-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
泌尿生殖道菌群的失衡与反复的尿路感染、细菌性阴道炎(BV)、早产、盆腔炎等女性健康问题密切相关,可能同时影响健康结局与健康相关生活质量。研究显示,阴道菌群与尿道、膀胱及肠道微生物群相互关联,形成复杂的生态网络。由于持续的暴露与迁移,干预策略往往需要从跨位点生态联动的角度进行系统设计,而不应仅关注单一位点或单一菌群环节。
近期研究表明,乳杆菌在阴道健康中通常占据优势,参与维持酸性环境与黏膜稳态。健康阴道菌群多表现为乳杆菌主导;而菌群多样性升高往往提示保护性主导结构减弱,可能与不适或失衡风险相关。细菌性阴道病(BV)与需氧性阴道炎(AV)常对应不同的失衡方向;CST(community state types)框架则有助于更系统地刻画不同阴道群落状态。
也正因为阴道菌群并非简单的“某些菌有/没有”,而是会呈现相对稳定的群落状态与失衡模式,所以在设计妇科阴道菌群干预时,更需要把人群的起始状态考虑进去。现有研究提示,阴道菌群从“乳杆菌优势型”到与BV/AV相关的失衡方向,可能对应不同的恢复难度与持续性,这也解释了为什么同一种干预在不同个体中疗效差异明显。尤其在失衡更顽固的状态下,单次短期调节往往难以完成长期生态重建,治疗思路需要兼顾环境/失衡因素的处理与关键菌群的建立及维持。
因此,未来更可行的策略是:基于起始菌群状态例如CST等框架实现起始状态分层,并把对症的干预路径与更匹配的递送方式对应起来,从而把短期改善转化为可持续的临床获益。
-乳杆菌优势、群落稳定性、宿主相容性-
阴道健康的核心,是稳定的乳杆菌主导结构
阴道菌群:一个有明确生态特征的微环境
育龄期阴道属于低氧、富糖原的微环境,能够支持很高的乳杆菌生物量,局部菌量可达到 10⁶–10⁹ CFU/mL。这个位点最重要的特征,是乳杆菌在群落中保持显著优势,并持续维持酸性环境和黏膜稳态。
因此,阴道健康的关键在于群落是否形成了稳定的主导结构,局部环境是否仍然支持这种结构长期维持。
健康状态通常表现为明确的乳杆菌优势
在大多数已研究队列里,健康阴道菌群都表现出比较清楚的乳杆菌优势。这里说的优势,不只是能检测到乳杆菌,而是它们在群落中占据主导地位,并持续维持局部低pH环境、屏障稳态和相对可控的炎症背景。
这也是阴道菌群和肠道菌群很不一样的地方。肠道经常强调多样性,而阴道更接近一个由少数优势菌维持稳定秩序的生态系统。对阴道来说,高稳定性通常比高复杂度更重要。
Lactobacillus crispatus:最稳定的健康相关菌
阴道相关乳杆菌中,Lactobacillus crispatus 仍然是与健康状态关联最稳定的代表性物种。Lactobacillus crispatus的重要性不只体现在丰度层面,也体现在对群落稳定性的支撑作用,以及更强的宿主保护潜力。很多与阴道稳态相关的能力,包括定植能力、代谢能力、抗感染潜力和宿主互作特征,都更集中地体现在这个物种上。
不同乳杆菌物种对应不同的生态意义
阴道菌群里常见的主导菌并不只有 L. crispatus。另外一个L. iners 也非常常见,两者合计可覆盖大部分已研究队列中的主导状态。
此外还有L. jensenii 和 L. gasseri ,但作为主导菌出现的比例则低得多。
阴道菌群失衡:主导结构散了
阴道菌群:多样性高未必是好事
阴道场景和肠道场景还有一个很大的不同点:高多样性并不天然代表健康。
研究显示,阴道菌群更高的多样性,往往伴随更高的烧灼感、瘙痒、疼痛发生率,也更常与性传播感染、早产、细菌性阴道病和需氧性阴道炎等风险相关。
这背后反映的,不是菌更多了,而是保护性主导结构被打散了。一旦乳杆菌优势减弱,局部pH、黏液环境、上皮屏障和免疫背景都可能一起变化,后续失衡相关菌就更容易扩张。
BV和AV代表的是两类不同的失衡模式
谈阴道菌群失衡时,最常见的两个是细菌性阴道病(BV)和 需氧性阴道炎(AV)。
CST框架:把不同群落状态更系统地表达出来
正因为阴道菌群存在不同主导型和不同失衡模式,研究界提出了CST(community state types)这个框架,用来更系统地描述阴道群落状态。
编辑
doi.org/10.1016/j.chom.2026.03.015
最经典的五类CST中:
后续又扩展出了更多亚型。
CST的意义在于将阴道菌群的研究从关注具体菌种的存在与否,转向描述其群落结构。相比于单一菌种的有无,了解菌群整体更接近哪种状态,以及是否偏离乳杆菌主导地位,更有价值。
CST很重要,但它只是起点
CST很有用,但真实世界里的阴道菌群并不总是那么整齐。很多样本本身就处在波动、过渡或混合状态中,很难完全被一个固定标签概括。也正因为这样,后续研究又引入了主题建模(topic modeling)、相关网络、模块分析等方法,希望更细致地描述群落梯度、共现关系和纵向变化。
编辑
doi.org/10.1016/j.chom.2026.03.015
阴道菌群是一个会变化的生态系统。健康状态不只是当前看起来正常,还包括这种主导结构能否在周期波动、生活干扰和宿主环境变化下继续保持稳定。
这一章节我们了解了阴道菌群本身的结构:什么样的群落更接近健康,不同乳杆菌物种各自处在什么位置,以及失衡大致会往哪些方向发展。
但在实际生理环境中,阴道并不是一个孤立存在的系统,它与邻近的尿道、膀胱以及肠道之间始终存在着持续的微生物交换。
女性泌尿生殖道在解剖结构上高度相邻,外阴、阴道、尿道、膀胱,乃至邻近的肠道,彼此之间都有持续的微生物暴露和迁移机会。也正因为这样,泌尿生殖道菌群更适合被理解成一个连续生态网络。
外阴、阴道、尿道等彼此相连,但各自的生态条件并不一样
虽然这些位点彼此接近,但并不意味着它们拥有完全相同的菌群结构。
编辑
doi.org/10.1016/j.chom.2026.03.015
外阴更接近皮肤环境,常见 Corynebacterium、Propionibacterium、Staphylococcus 等皮肤相关菌,同时也可检出Lactobacillus crispatus、Lactobacillus iners 这类典型阴道相关物种。
阴道则是乳杆菌优势最明显、菌量最高的核心位点。
膀胱和尿路长期以来曾被视作无菌,但这个认识已经明显过时。现有培养组学和测序研究都提示,健康女性膀胱存在低生物量但真实存在的菌群结构,其中既可能包括潜在尿路致病菌,也可能包括与健康相关的共栖菌,比如 L. iners 、L. crispatus 等。
子宫内膜则属于更低生物量的环境。乳杆菌和其他阴道相关菌曾在内膜组织中被检测到。
但这始终有一个方法学问题:这些信号究竟代表真实存在,还是采样过程中的带入污染,目前仍然很难轻易下结论。
肠道-阴道-尿路的生态联动
近年的研究越来越多提示,阴道和尿路之间存在真实的微生态联系。比如在尿急性尿失禁等状态下,尿路菌群更容易出现 Gardnerella富集和 Lactobacillus 减少;而在复发性UTI、尿失禁和膀胱过度活动等问题中,也经常能看到乳杆菌保护性信号减弱。
也就是说,尿路问题并不总是一个单纯的泌尿系统问题。局部菌群结构、阴道端的保护性主导菌状态,以及更上游的微生物来源,都可能参与其中。这对理解复发性问题尤其重要。
如果再把视角往外扩一点,肠道的重要性就会越来越明显。解剖邻近决定了肠道本身就是很多机会致病菌的重要储库,一些尿路相关病原体和真菌可以先在肠道富集,再经会阴区域传播,随后短暂出现在阴道,最后进入尿路。
这条路径里最典型的对象包括尿路致病性大肠杆菌(UPEC) 、白色念珠菌(Candida albicans)。
另外,group B Streptococcus、GBS、 Gardnerella vaginalis 虽然不一定是最典型的尿路主致病菌,但它们在局部短暂定植后也可能诱导炎症或改变局部环境,从而给后续感染创造条件。
很多复发问题,不能只按单一位点来理解
把这些线索放在一起看,很多反复BV、反复UTI和一些长期波动的局部不适,更像是整个连续网络没有恢复稳定。
上游储库持续存在、局部保护性菌群恢复不足、相邻位点之间反复暴露,这几个因素叠加,就很容易形成复发闭环。
如果把阴道、尿路、膀胱和肠道放在同一个连续网络里看,很多原本零散的临床现象就会变得更容易理解。接下来的问题是:在这个网络里,长期决定菌群格局的变量到底是什么?
持续塑造着泌尿生殖道菌群的结构
经期、性生活、会阴卫生、阴道冲洗、阴毛处理方式、内衣类型等因素,都会影响阴道菌群结构。
注:VaHMP、比利时 Isala、中国大队列和 VALENCIA 等研究都给出过相关线索。只是,这类因素在不同人群中的表现并不完全一致,也容易受到采样、样本处理和分析方法差异的影响。
能够长期改写群落结构的核心变量,还是年龄和激素水平,尤其是雌激素。
女性生命周期中雌激素水平和阴道微生物组的动态
编辑
DOI: 10.1016/j.chom.2026.03.015
月经周期、孕期、产后、围绝经期和绝经后,这些阶段之所以会呈现出不同的菌群状态,本质上都和雌激素驱动下的局部生态位变化有关。
在低雌激素阶段,乳杆菌优势往往更难维持,感染易感性也更高。黄体期、产后、围绝经期和绝经后,都是更容易出现乳杆菌下降和群落失衡的窗口。这个变化不仅出现在阴道,也会延伸到尿路端。
雌激素能够促进阴道上皮细胞合成并储存糖原,而这些糖原会随着上皮脱落和裂解释放到局部环境中,成为阴道微生物的重要碳源。
不过,糖原并不会被菌群直接高效利用。它需要先在胞外被 α-淀粉酶等因子分解成麦芽糊精、麦芽糖和葡萄糖等更小的分子,随后这些底物才进入微生物代谢。
也就是说,雌激素改变的并不只是上皮状态,还改变了局部可利用营养的供给方式。
乳杆菌能够高效利用糖原分解后的这些小分子底物,这是它们在育龄期阴道更容易建立优势的重要原因之一。
与之相比,一些失衡相关菌群更擅长利用另一类资源,比如黏液相关糖链。已有研究显示,Gardnerella vaginalis 和 Prevotella bivia 可通过唾液酸酶等酶系利用黏蛋白相关底物,为自身扩张提供支持。
这说明阴道内的竞争不只是哪种菌更多,而是不同菌群在争夺不同来源的营养。乳杆菌优势能否维持,很大程度上取决于糖原相关底物是否持续供应;而一旦局部环境变化,擅长利用黏液糖链的菌群就更容易增多。
已有数据表明,阴道相关菌群中存在多种糖原去支链酶、普鲁兰酶样酶,其中既包括 L. crispatus、L. iners,也包括 G. vaginalis、Mobiluncus mulieris、P. bivia 等与失衡相关的非乳杆菌成员。
这类酶之所以值得关注,是因为它们可能直接影响菌群对局部碳源的获取效率,也可能决定不同菌株在阴道环境中的定植能力和竞争位置。后面无论是菌株筛选、功能评估,还是检测指标设计,单纯看分类学丰度很可能不够,围绕糖原降解、黏液利用和局部代谢通路建立功能型解读,会更有意义。
如果说激素是长期变量,那么生命周期事件就是把这种变化放大的关键节点。
产后是最典型的例子。
在 Isala 这项纳入 3000 多名健康女性、年龄覆盖 18~98 岁的大型队列中,生育次数是影响阴道菌群组成的重要预测因素之一,影响甚至强于部分生活方式变量。
产后阶段同时存在剧烈的激素变化和组织修复过程,局部微环境会经历一次明显重置,乳杆菌优势常常需要一段时间才能恢复。随着雌激素逐步回升,乳杆菌丰度通常也会上升,尿路感染发生率可能同步下降,但恢复时间和恢复程度都存在明显个体差异。
围绝经期和绝经后同样如此。随着雌激素下降,阴道和尿路两端支持乳杆菌的条件都会减弱,局部环境更容易向高 pH、低乳杆菌和炎症易感方向漂移。很多围绝经期和绝经后女性的反复不适,背后常常还叠加着一个更长期的生态位转变过程。
性生活、经期和局部护理方式确实会推动菌群短期波动。
Isala 队列中,近期性生活与 Staphylococcus、Streptococcus、Peptoniphilus 等菌的暂时增加相关;这一现象也在一项纳入 10 对伴侣的小型干预研究中得到支持。
另一个个案研究显示,性生活后阴道和阴茎微生物组的变化可持续数天,再逐步回到基线。
从整体上看,阴道菌群通常具有一定恢复力,能够随着时间推移重新接近原有组成,只是这种恢复的程度和速度存在明显个体差异。
鉴于性活动在人类生殖和整体福祉中的根本作用,进化机制可能倾向于对短期微生物干扰保持一定耐受性。 这种韧性部分归功于阴道乳酸杆菌的抗菌特性,尤其是其乳酸生成能力,以及相关的免疫耐受和免疫调节通路。
相比之下,尿路菌群可能对这类扰动更敏感。
这也是为什么性生活后排尿常被建议用于降低 UTI 风险,逻辑上是希望通过排尿冲刷潜在致病菌,只是目前支持这一做法的直接证据仍然有限。
也正是在这种“能够恢复,但又并非不会失稳”的背景下,针对性的菌群干预才逐渐成为研究重点。
激素水平、糖原代谢和生命周期事件,共同构成了泌尿生殖道菌群变化的基本背景。也正因为菌群状态始终受这些条件约束,后续对干预效果的判断,不能只停留在短期变化本身。
-定植、匹配、长期稳定性-
围绕女性泌尿生殖道菌群的干预,临床上已经积累了不少积极信号。无论是 BV、VVC、复发性 UTI,还是围绝经期阴道环境重建,都有研究观察到局部菌群改善、症状缓解,或者群落向乳杆菌优势状态移动。
下表也已经把这一领域较有代表性的临床研究集中列了出来,覆盖单菌株、菌群联合体以及菌群移植等多种路径。
单菌株
编辑
多菌株
编辑
移植
编辑
doi.org/10.1016/j.chom.2026.03.015
这类结果往往并不稳定。有些研究能看到菌群结构改善,但临床终点改善有限;有些研究短期有效,停用后又回到原来的失衡状态;还有一些研究在人群 A 中成立,换到另一类场景后效果就不明显。
这意味着,泌尿生殖道菌群干预已经不能只问有没有效果,而要继续挖掘:这种效果发生在哪一层,是短期菌群变化,还是长期定植;是局部炎症缓解,还是复发率下降;是中间替代终点改善,还是更远端的生殖结局获益。
口服一直是最常见的路径,原因很现实:依从性更高,开发路径更成熟,也更容易以食品补充剂形式进入市场。只是,进入阴道位点之后,口服摄入的菌株究竟能不能经过肠道、会阴区域和局部生态屏障,最后在阴道形成稳定存在?
这件事并没有想象中容易。
这一点在经典口服组合Lacticaseibacillus rhamnosusGR-1 和 Limosilactobacillus reuteri RC-14身上表现得很典型。
一项纳入 64 名健康女性的随机对照试验显示,口服这组菌株后,阴道菌群可以从 BV 样状态向正常乳杆菌优势状态移动;
一项纳入 55 名 VVC 女性的随机对照试验中,这组菌株与氟康唑联用后,可降低症状并减少念珠菌检出;
在 66 名孕妇中进行的双盲随机对照试验里,也观察到 35 周时 Nugent 评分下降。
注:Nugent 评分是一种用来判断细菌性阴道病(BV)的实验室评分方法,分数越低 → 阴道菌群越偏向乳酸杆菌主导,通常更稳定;分数越高 → 越提示菌群失衡,更符合细菌性阴道病。
但另一项针对高早产风险孕妇的随机交叉研究也提示,口服后的阴道端定植本身是有限的。
也就是说,口服方案当然可能影响阴道菌群,但这种影响未必建立在稳定阴道定植上,更像是跨位点的微生态调节。这个边界很重要,因为它决定了口服路径更适合放在长期管理、风险调节和肠-阴-尿轴干预里理解,而不能简单等同于局部重建。
阴道位点长期稳定相关的核心,更多集中在下面这几个物种:Lactobacillus crispatus、Lactobacillus jensenii、Lactobacillus gasseri、Lactobacillus iners;而很多早期产品所采用的菌株,工业化性能可能很好,位点适配性却未必足够强。
一旦菌株本身不具备足够的局部适应能力,后续就很难完成生态重建。它可能可以短期抑制Gardnerella vaginalis、Fannyhessea vaginae、Candida 等问题相关菌或真菌,也可能带来乳酸环境变化,但只要无法长期占住位点,群落很快就可能重新漂回失衡状态。
这一点在阴道菌群场景里尤其明显。
有人仍保留部分乳杆菌优势,只是群落开始波动;有人已经进入典型的CST IV样失衡状态,以 Gardnerella、Fannyhessea、Prevotella、Sneathia等为核心;也有人同时伴随局部炎症、pH 升高和高复发倾向。
在这种前提下,同样的方案当然不会得到一样的结果。对起始状态较轻、局部仍保留乳杆菌基础的人群,重建相对容易;而在长期复发或典型CST IV样状态下,单一干预很容易只带来短期变化。
在细菌性阴道病场景,先用甲硝唑等方案降低厌氧相关菌负荷,再做后续菌群干预,是很常见的路径。短期看,这样做确实可以创造一个更有利于乳杆菌恢复的窗口期。只是,抗菌之后的生态位并不会自动恢复。只要底层条件没有改变,例如局部支持乳杆菌的能力不足、炎症背景仍在、原有保护性菌群缺位,群落就很容易再次被失衡相关菌占据。
Lactin-V 的研究之所以被反复引用,一个很重要的原因也在这里。它不是简单证明“用了菌株有变化”,而是在抗菌后的窗口期里,进一步验证了某些位点适配菌株确实有机会完成定植和重建。但这条路径目前也只能说明“有机会”,还远远谈不上在所有人群里都能稳定复制。
这一点是泌尿生殖道菌群研究里经常被忽略、但又非常关键的问题。不同研究看的终点并不一样:有些看症状,有些看 Nugent 评分,有些看乳杆菌检出率,有些看细菌性阴道病复发,有些看炎症因子,也有些直接看妊娠或生殖结局。终点不同,得到的结论就很难直接横向比较。
-单菌株、联合体、菌群移植-
前面讨论的是菌群状态为什么会失稳,以及现有干预为什么常常停留在短期改善。再往下看,值得区分的,是不同路径各自在解决什么问题。
1
单菌株路径,重点已经转向阴道位点适配菌
单菌株路径的优势在于成分清晰、质控相对容易,也更适合和具体临床终点建立对应关系。
当前更有代表性的对象,主要集中在 Lactobacillus acidophilus KS400 和Lactobacillus crispatus CTV-05(Lactin-V)两条线。
较早进入应用体系的一条线,是 Lactobacillus acidophilus KS400
这个菌株在欧洲已应用多年,常与低剂量雌三醇联用。
一项针对16名绝经后女性的I期研究表明,在未全身吸收雌二醇或雌酮的情况下,阴道萎缩有所改善,乳杆菌得到恢复,这对于激素依赖性乳腺癌女性患者来说是一个重要的安全考量因素。
在一项针对32名非绝经期女性的安慰剂对照试验中,KS400改善了细菌性阴道病症状和乳酸杆菌定植情况,治愈率分别为88%和22%。
从机制看,KS400 还被报道可产生对 Gardnerella vaginalis 和 GBS 具有活性的细菌素样物质。
更能代表当前方向的,是 Lactobacillus crispatus CTV-05(也就是 Lactin-V)
这个菌株来自阴道位点,本身更符合局部生态环境的要求,因此也比早期经验型菌株更受关注。
一项2b期临床试验评估了经阴道给药的 L. crispatus CTV-05,共纳入 228 名女性(其中 152 人 进入 Lactin-V 组,76 人 进入安慰剂组),结果显示其可降低细菌性阴道病的复发率。
进一步对 213 名女性、1156 次访视样本的分析还显示,成功定植 L. crispatus 的人群更容易维持 L. crispatus 主导群落,并伴随炎症细胞因子持续下降。
这组证据的重要性在于,它把几个原本经常分开的环节连到了一起:菌株定植、群落重建、局部炎症缓解,开始出现在同一条证据链上。单菌株路径的重点,也因此越来越明确地转向阴道位点适配菌。
2
经典口服组合,更接近跨位点调节的早期验证
如果说局部阴道给药更强调位点适配和直接定植,那么经典口服组合对应的是另一条路径:通过肠道、会阴、泌尿生殖道之间的微生态联动,间接影响阴道和尿路状态。
这里最有代表性的一组菌株,是 Lacticaseibacillus rhamnosus GR-1 和 Limosilactobacillus reuteri RC-14。
这组组合的意义,首先在于它较早证明了泌尿生殖道菌群可以被主动调节。围绕 GR-1 和 RC-14 的临床研究已经积累了不少信号,包括阴道菌群向乳杆菌优势方向移动、VVC 相关症状改善,以及复发性 UTI管理中的潜在价值。也正因为这样,它成为这一领域最早被广泛讨论的口服路线之一。
但这条路径的边界同样很清楚。口服摄入并不等于阴道端稳定定植,已有研究已经提示,这组菌株经口服后在阴道局部的真实定植能力有限。
换句话说,它更适合被理解为跨位点调节,而不是阴道局部直接占位。对一些需要减少抗生素暴露、又希望维持长期微生态稳定的人群来说,这条路径仍然有现实意义;但如果目标是快速完成阴道位点的稳定重建,单靠经典口服组合往往不够。
当前的益生菌和LBP给药途径,即口服、阴道、外阴(局部)和经尿道
编辑
doi.org/10.1016/j.chom.2026.03.015
3
多菌株联合体,开始面对“单菌株覆盖不全”的问题
单菌株路径的优势很明确,但边界也同样明显。局部定植、持续占位、抑制病原、调节炎症和维持长期稳定,往往很难由一个菌株同时完成。也正因为这样,干预思路开始从“选一个更好的菌株”继续往前走,进入多菌株联合体阶段。
这一方向的核心,是把原本分散在不同菌株上的能力重新组合起来。
一类联合体更偏向功能拼接
外阴阴道念珠菌病相关研究中,曾使用过含 L. rhamnosus GG、L. pentosus KCA1、Lactiplantibacillus plantarum WCFS1 的阴道凝胶;后续版本又发展出 L. rhamnosus YUN-S1.0、L. pentosus YUN-V1.0、Lp. plantarum YUN-V2.0.
相关研究的逻辑很明确:一个负责抑制念珠菌生长,一个负责抑制菌丝形成,另一个削弱其他毒力表型。
一项开放性研究只纳入了 20 名患者,而且使用氟康唑作为救急药物,该凝胶耐受性良好,并显示出一些益处,如减轻症状和改善患者报告的结局。
不过,这条路径在早期阶段的证据仍然偏探索性。现阶段更适合把这类结果理解为功能验证,而不是决定性疗效证据。
另一类联合体则更贴近阴道长期稳定性本身
最值得关注的是VS-01,它由 L. crispatus LUCA103、L. jensenii LUCA011、L. gasseri LUCA009 组成,并联合营养支持组分。
这个设计本身就很有代表性:它不再满足于选几个常见菌,而是从大量分离株中筛选出与长期稳定阴道群落相关的遗传特征,再叠加有利于L. crispatus 生长的底物和环境支持。
随机安慰剂对照研究中,阴道给药的 VS-01 能在一个月经周期内让大部分受试者恢复到 L. crispatus 主导状态,并持续到停药后约20天;而相同菌株制成口服版本后,只观察到较弱且短暂的定植。
这个结果呈现一个关键问题:联合体设计要和局部递送方式一起看,二者一起决定结果。
为什么某些联合体更稳定?
有一类研究更进一步,开始用合成生态学思路来理解为什么某些联合体更稳定。相关工作显示,L. crispatus 可与 L. jensenii 以及部分 Limosilactobacillus 成员形成较稳定共现模块;模型还预测精氨酸、赖氨酸、GABA和部分维生素代谢可能参与菌株间交叉喂养。
也就是说,后续高质量的联合体设计,会更依赖可验证的共存规则和代谢互补关系。
4
VMT和FMT:在处理更高层级的生态问题
当单菌株和定义明确的联合体仍不足以完成重建时,研究自然会走向更完整的生态转移。
VMT:复发性BV中群落重建
VMT最早引发关注,是因为在5例顽固性BV患者中,4例获得了5~21个月的长期缓解。
后续49名受试者的随机双盲对照研究中,虽然整体并未让所有人都稳定转入乳杆菌主导状态,但在成功达到乳杆菌优势的人群中,大约有一半可以检测到供体来源乳杆菌的植入;再往后的研究还提示,经过预处理后,转化率可提升到约50%,同时伴随更偏抗炎的局部免疫变化。
VMT最有价值的地方,在于直接测试复杂原生群落能否在受体阴道建立新秩序。
FMT针对复发性尿路感染
FMT进入这个领域,则主要是因为复发性尿路感染(UTI)背后常常连着肠道储库问题。在反复艰难梭菌感染患者中,FMT后随访期内复发性尿路感染频率下降;在反复ESBL Klebsiella pneumoniae UTI个案中,口服冻干FMT后18个月未再复发。
现阶段这类证据仍然有限,但其概念意义很强:上游肠道储库不处理,局部尿路和阴道端的反复失衡就很难结束。
-这些菌具体释放了什么分子、调动了什么机制-
不仅是乳酸和过氧化氢等传统代谢物的作用,越来越多的新型分子和机制开始被发现,并且为菌株的筛选和干预策略提供了更深层次的解释。
1
乳酸:仍然是阴道位点最确定的机制主线
在阴道相关乳杆菌的所有作用中,乳酸仍然是最为稳定和确定的机制之一。
L.crispatus、L.gasseri、L.jensenii、L.iners都可利用糖原分解后形成的小分子糖,持续产生乳酸,从而维持局部低pH环境,并对多类问题相关菌形成选择压力。
这里的作用对象覆盖了BV相关菌群、部分真菌,甚至延伸到病毒相关场景。
例如,在复发性细菌性阴道病中,一项针对 110 名患者的随机研究显示,阴道内使用低聚乳酸凝胶(每周 1 次、每周 2 次或不治疗)具有治疗效果。在尿路感染、外阴阴道假丝酵母菌病,甚至 HIV 和人乳头瘤病毒(HPV)等病毒感染背景下,也观察到了积极作用。
其背后至少涉及三层机制:
L-乳酸和D-乳酸的差异,后面很可能会变成筛选重点
L-乳酸 和 D-乳酸这两个异构体都参与抗菌,但并不完全相同。
编辑
后续如果继续筛选位点适配菌株,可以进一步看其乳酸异构体构成、D/L 乳酸脱氢酶相关基因,以及这些异构体在真实阴道环境中的作用方向。
不是会产乳酸,就一定是好菌
一些通常被视为条件致病菌的泌尿生殖道微生物成员,如阴道加德纳菌(G. vaginalis),也能产生乳酸,只是产量要低得多。然而,这种潜在益处必须与其有害因子的存在一并权衡,例如阴道加德纳菌产生的细胞溶素 vaginolysin,它会破坏上皮完整性并促进炎症。
与糖原利用有关的另一个提示
筛候选菌株时,除了看它产不产乳酸,还可以关注它是否具备糖原降解相关酶活性,因为这会影响它能否有效利用阴道环境中的碳源,并在菌群竞争中获得优势。
这个机制目前有合理推测,但还需要更多研究验证。
2
过氧化氢:曾被重视,但体内真实作用有争议
过氧化氢曾长期被认为是阴道乳杆菌的重要抗菌机制,甚至还被用于细菌性阴道病的临床冲洗治疗研究。
过氧化氢在体内是否真的起到关键治疗作用,目前仍然存在较大争议。原因主要有几点:
在靠近上皮、局部有氧的微环境中,过氧化氢或许仍可作为一种信号分子参与调节炎症通路。只是,这种生理意义和治疗潜力还需要进一步确认。
3
特殊肽类和代谢物:很有潜力,但很多还停留在发现阶段
细菌素、核糖体合成并经过翻译后修饰的肽(RiPPs)、非核糖体肽(NRPs)和聚酮合酶相关产物(PKSs)被越来越多地认为是乳杆菌等有益菌发挥抗菌作用的重要分子。虽然这些分子的潜力已经显现,但目前它们的功能和应用仍然处于探索阶段。
细菌素和RiPPs的潜力
细菌素是一类由细菌产生的抗菌肽,它们能有效抑制多种病原菌的生长。近年来,针对细菌素的研究取得了一定进展。
例如,L. crispatus产生的crispacin 467表现出对革兰阳性细菌的强效抑菌作用。
L. crispatus K313产生的crispanobacin M则能够破坏革兰阳性和革兰阴性病原菌的细胞壁和膜,显示出其在临床治疗中的应用潜力。
RiPPs是一类经过翻译后修饰的抗菌肽,已被证明在体外对多种病原菌产生显著的抗菌作用。
L. iners产生的inecin L可以在极低浓度下有效杀死G. vaginalis和GBS的细胞;
L. gasseri产生的lactocillin能抑制包括金黄色葡萄球菌、草绿色棒状分枝分枝菌、Gardnerella vaginalis 等多种病原菌的生长。
随着更多细菌素和RiPPs的发现,我们有理由相信它们将成为未来抗菌治疗的新方向。
NRPs和PKSs的多重作用:抗菌和药理潜力
NRPs和PKSs也是研究中的重点。尽管这些分子通常具有抗生素样的活性,但它们的作用可能更加多样化,包括抗病毒、免疫调节和抗肿瘤作用。
NRPs通常由一些复杂的基因簇编码,这些基因簇一般出现在基因组较大的细菌中,如链霉菌和芽孢杆菌。因此,过去我们认为基因组较小的乳杆菌不太可能合成NRPs。
然而,最新的研究发现,乳杆菌也能够合成NRPs,并且它们产生的特定代谢物(如L. iners产生的tyrocytabine)展现了抗菌作用。
一项荟萃分析比较了来自三项不同研究的宏基因组数据,共涉及381名女性,其中包括61名早产队列中的女性,该分析揭示了健康女性体内特定生物合成基因簇(BGCs)的存在与预防早产之间的关联。这些BGCs包括RiPPs、NRPs、NRP样簇、PKS簇。
尽管目前尚未在阴道乳杆菌中找到功能性PKS基因簇,但这一发现仍然为我们提供了有价值的线索,表明我们对这些分子功能潜力的理解仍有许多待探索的地方。
代谢物的发现与应用:基因组挖掘工具的进展
随着基因组挖掘工具(如VIRGO、antiSMASH、MIBIG、SCARAP)的不断改进和更新,科研人员能够识别以前难以发现的III型聚酮合酶(T3PKS)基因簇,从而扩大了专用代谢物的目录。这一进展使得我们能更加深入地了解乳杆菌等微生物的代谢产物。
与传统抗生素相比,使用能够在原位生产抗菌化合物的活细菌有望降低抗药性的发展风险,因为其选择性压力较低且更加局部化。
一些由乳杆菌生产的抗菌分子和肽类,如plantaricin EF(由多个Lactiplantibacillus plantarum菌株生产)和nisin(由多个Lactococcus lactis菌株生产),已被证明具有抗炎和支持上皮功能的作用,拓宽了它们的治疗潜力。
这一发现特别重要,因为炎症与泌尿生殖道疾病(如急性阴道炎、盆腔炎、尿路感染、早产、子宫内膜炎、子宫内膜异位症和细菌性阴道病)有着密切的关系。
近期的研究还识别出了来自阴道乳杆菌的一些候选分子,这些分子表现出了抗炎效果,包括:
尽管这些分子在体内的具体作用仍需进一步验证,但它们为改善阴道益生菌的抗炎潜力提供了新方向。
另外,最近的研究指出,半胱氨酸代谢(特别是半胱氨酸合成酶)可能是调节L. iners菌株特定生长和功能的潜在靶点。
这为我们理解乳杆菌如何适应不同环境提供了新的思路。
还有一些有趣的代谢物,如吲哚-3-醛及其相关芳香化合物。研究表明,吲哚-3-醛能够通过芳香烃受体(AhR)刺激IL-22和IL-18的产生,并在小鼠模型中提供对念珠菌感染的保护。
然而,是否能在阴道乳杆菌中产生这种化合物仍有待进一步验证。
4
细胞壁分子:微生物与宿主免疫的关键界面
细菌的细胞表面是微生物和宿主免疫系统的主要接触点,也就是说宿主先看到的,不是代谢物,而是细胞表面,这决定细菌是否会被宿主识别为有益菌或病原菌。
细胞壁分子在这个过程中起着重要作用,具体来说,细胞壁分子帮助宿主判断是诱导耐受性反应(对共生菌)还是启动免疫反应(清除病原菌)。
它需要在高暴露环境中保持相对耐受,同时又不能放弃对潜在病原的识别。所以说高质量的优势菌株,不只是少惹事,还要会来事——会把宿主反应引导到更可控的方向。
L. crispatus的细胞壁分子
在L. crispatus中,细胞表面包含了S层蛋白和胞外多糖(EPS)。这些分子为细菌提供了一种保护机制,能够防止宿主免疫系统的识别和攻击。
——S层蛋白
这种蛋白能与宿主免疫受体(如DC-SIGN)结合,调节免疫反应,减少免疫系统的反应。例如,研究发现,L. crispatus的S层蛋白能够屏蔽促炎配体,避免它们被宿主的TLR2/6受体识别,从而降低免疫反应的强度。
这里最关键的信息有两点。
第一,L. crispatus 的优势并不只是代谢优势,它在宿主识别层也有直接功能。
第二,这种作用是菌株特异性的,并不是所有 L. crispatus 都能简单视为等价。这对后续菌株开发非常关键,因为把比较标准推进到了同物种不同分离株的表面结构差异。
——EPS
相关研究通过关键酶失活实验发现,当 EPS 启动糖基转移酶功能被破坏后,菌株与阴道上皮细胞的相互作用会明显改变。
具体来说,IL-1β、IL-6、IL-8 和 MMP-10 等促炎相关指标会上升,而 CST5(cystatin D)以及 LAP/TGF-β-1 相关耐受信号则下降。
这个结果说明 EPS 至少承担两类功能:
也就是说,EPS 并不是外面那层糖壳这么简单,它本身就在决定局部炎症背景。
L. jensenii细胞壁组成与代谢活动与早产有关
一项小规模的研究(包括35名早产妇女和14名足月分娩妇女)发现,L. jensenii的细胞壁和糖组分与早产的发生有关。
研究认为,L. jensenii独特的细胞壁结构和糖组分,以及它对宿主粘蛋白和糖类的利用能力,可能使其在免疫反应较强的早产环境中定植并逃避免疫监视。这些特征可能帮助它在早产条件下更容易定植。然而,也有可能这些菌株已经更适应于这种病理环境。
同一个物种,不同表面结构的菌株,可能适配的是完全不同的环境状态。未来做妇科、产科相关分层时,这类信息会非常有价值。
另一项研究表明,L. crispatus的细胞表面糖复合物的复杂性可能与该物种及其菌株在微生态失调环境中逃避宿主免疫系统的能力相关。在这种环境下,乳杆菌可能通过多样化的细胞壁糖复合物,使自己不被宿主免疫系统识别,从而增加其生存机会。
阴道乳酸杆菌的有益作用机制
编辑
doi.org/10.1016/j.chom.2026.03.015
限制病原的细胞表面分子
细胞表面分子不仅与免疫系统相关,还直接帮助细菌限制病原入侵。
例如,L. plantarum CMPG5300菌株通过特异性黏附素阻止HIV进入细胞。这种黏附素能够与HIV病毒表面蛋白结合,减少病毒与宿主细胞的结合,从而降低感染风险。
注:尽管这一功能展示了其潜力,
但目前尚未能将这一发现应用于人体或临床试验中。
同样,L. rhamnosusGR-1的凝集素在泌尿生殖道中发挥着类似作用。研究表明,这种凝集素有助于抑制UPEC(尿路致病性大肠杆菌)等病原菌的入侵,减少尿路感染的发生。这为乳杆菌作为益生菌应用于感染预防提供了有力支持。
这说明优势菌的保护作用并不总需要先把对方杀掉,有时候,只要优先占住黏附位点、压缩病原的表面空间,就足以改变后续结局。对于阴道和尿道这类高暴露黏膜位点来说,这种抢占的能力非常重要。
5
胞外囊泡:微生物与宿主之间的递送系统
胞外囊泡(EVs)是一种复杂且多功能的递送系统,能够携带生物活性分子并在宿主中发挥作用。EVs呈球形,具有脂质双层结构,内含多种活性分子,因此被认为具有作为后生元的应用潜力。由于其独特的结构和组成,EVs在微生物研究中引起了越来越多的关注。
编辑
例如,来自L. crispatus BC5和L. gasseri BC12的EVs已被证明能够显著增强乳杆菌的细胞附着能力,同时减少病原菌(如大肠杆菌、金黄色葡萄球菌、GBS和肠球菌)的附着。
尽管EVs在感染控制、免疫调节和微生物群支持中展现了巨大的潜力,但其应用仍然面临几个挑战:机制不明确、分离方法尚未标准化、监管不明确、临床验证不足。
但就研究价值而言,它已经足够说明一个方向:阴道位点的干预未来未必都要依赖活菌本身,某些“菌源功能载体”也可能独立进入应用视野。
过去很多年,女性泌尿生殖道菌群研究最主要的工作,是把不同群落结构和不同健康结局对应。
到了现在,研究重心已经明显往前推进了一层。我们已经逐步了解:什么样的菌群状态与健康更相关,哪些物种在不同位点里更常出现,哪些失衡模式与BV、AV、UTI、早产和炎症风险相关等。
接下来关键,正在转向更具体的层面:哪些菌株能在阴道位点稳定存在,哪些分子模块可以解释它们的保护作用,哪些干预方案能把短期生态变化变成长期临床获益。
干预路径的演变也很能说明问题。
对菌群检测端来说,除了我们常关注的乳杆菌、加德纳菌等丰度,后续更有解释力的评估体系,可能需要逐步覆盖三层:
编辑
<来源:谷禾健康阴道菌群检测数据库>
此外,肠道菌群检测作为微生物组研究的重要组成部分,也逐渐为我们提供了新的视角。肠道菌群和生殖道菌群相互关联,它们不仅影响各自的健康状态,还通过微生物的迁移和相互作用,共同作用于全身健康。
在庞大的样本和完善的肠道菌群数据库中,我们可以在微生物的多层次交互中挖掘更多潜在的健康信号,从而帮助揭示更全面的健康趋势。这一综合视角也为微生物组干预的精准性和有效性奠定了基础。
对产品开发端来说,接下来的门槛也会越来越清晰。需要把菌株来源、位点适配、功能机制、给药方式、局部定植和临床终点串起来。
总的来说,女性健康这一长期被低估的领域,正在迎来全新的发展机遇,高质量的产品开发,已经越来越依赖菌株库建设、纵向人群分层、局部给药技术、机制验证模型和更严格的临床试验设计,并通过有效结合菌群检测数据与干预措施,形成完整的健康管理路径。
主要参考文献:
Dillen J, Dricot CEMK, Croatti V, Lebeer S. The female urogenital microbiome: Ecological insights, therapeutic strategies, and molecular mechanisms. Cell Host Microbe. 2026 Apr 8;34(4):567-587.
Gutzeit O, Gulati A, Izadifar Z, Stejskalova A, Rhbiny H, Cotton J, Budnik B, Shahriar S, Goyal G, Junaid A, Ingber DE. Cervical mucus in linked human Cervix and Vagina Chips modulates vaginal dysbiosis. NPJ Womens Health. 2025;3(1):5.
Ndlovu KS, Pavan RR, Corry J, Gregory AC, Mahamed S, Zotova N, Tabala M, Babakazo P, Funderburg NT, Yotebieng M, Klatt NR, Kwiek JJ, Sullivan MB. The vaginal microbiome of pregnant people living with HIV on antiretroviral therapy in the Democratic Republic of Congo: a pilot study and global meta-analysis. mSphere. 2026 Feb 24;11(2):e0059725.
Chen M, Qi C, Qing W, Zhou Z, Zhang Y, Chen R, Hou Y, Ou J; CALM2004 Consortium Investigators; He Y, Zhou H. Vaginal microbiome and sexually-transmitted pathogens in Chinese reproductive-age women: a multicentre cross-sectional and longitudinal cohort study. Nat Commun. 2025 Nov 14;16(1):10002.
Vander Donck L, Victor M, Van Beeck W, Van Rillaer T, Dillen J, Ahannach S, Wittouck S, Allonsius CN, Lebeer S. Host-independent synergism between Lactobacillus crispatus and other vaginal lactobacilli. Cell Rep. 2025 Sep 23;44(9):116171.
谷禾健康
编辑
具核梭杆菌(Fusobacterium nucleatum)是一种革兰氏阴性、专性厌氧的纺锤形细菌,主要存在于人类口腔,也可在胃肠道中检出。
在口腔中,具核梭杆菌作为牙菌斑生物膜的关键“桥接菌”,通过共聚集促进病原体定植。其表面黏附素介导与宿主细胞及其他细菌结合,推动生物膜成熟。在健康丰度范围内下其有助于维持菌群与免疫稳态;而口腔卫生不良或免疫抑制引发的菌群失衡可促使其转为致病,加重口腔疾病,是引起牙周炎、口臭、牙髓感染甚至口腔癌的原因。
随着研究深入,发现其作用已不局限于牙周病。大量证据表明,具核梭杆菌与炎症性肠病、结直肠癌及心血管疾病等密切相关。其可黏附上皮和内皮细胞,调控免疫反应并重塑局部代谢与炎症通路,从而参与疾病发生与进展。在炎症性肠病中加重屏障损伤与慢性炎症;在结直肠癌中促进肿瘤生长、转移及耐药;在心血管疾病中通过系统播散诱导血管炎症、动脉粥样硬化及不良心脏重构。
具核梭杆菌已成为连接口腔健康与全身疾病的重要“关键节点”微生物,本文阐述了具核梭杆菌与这些主要疾病联系起来的机制通路和临床证据,并探讨针对性干预策略,以加深对具核梭杆菌宿主作用的认识,为其相关疾病的诊断与治疗提供新思路,对深化口腔—全身健康关联及推进精准防治具有重要意义。
具核梭杆菌(Fusobacterium nucleatum)隶属于梭杆菌属,是梭杆菌门中重要的革兰氏阴性厌氧杆菌,而具核梭杆菌是其中重要的条件致病菌之一。
1
细胞形态
•革兰阴性杆菌;
•典型梭形结构:两端尖细,中间膨大,常呈细长丝状或短杆状;
•大小:长约5–10μm,宽约0.5–1μm;
•无芽孢、通常无鞭毛(无运动性);
•表面结构:外膜含脂多糖(LPS)、具有多种黏附蛋白(FadA、Fap2等)。
2
生长环境
•严格厌氧菌、对氧极其敏感;
•最适生长:低氧/无氧环境(如牙龈沟、生物膜深层);
•温度:约37°C(人体温度);
•pH:中性或微酸性;
•营养需求:富含蛋白质/氨基酸环境。
3
人群分布和主要定植部位
•健康人群:广泛存在(几乎普遍定植),属于共生菌/条件致病菌。
•疾病相关富集
在以下疾病中显著升高:
-牙周炎
-口臭
-根尖感染
-结直肠癌(CRC)
-炎症性肠病(IBD)
-心血管疾病
-妊娠相关感染
•主要定植部位
主要定植于口腔,是口腔生物膜的核心成员,主要分布于:
–牙菌斑(尤其龈下)
–舌背
–扁桃体隐窝
•其他部位(条件性存在)
–肠道(尤其病理状态)
–女性生殖道
–呼吸道
•跨部位传播能力
研究发现,具核梭杆菌具有跨部位迁移能力:
-可通过血流(菌血症);
-或吞咽途径扩散至结直肠、胎盘及心血管组织。
4
代谢能力
•能量代谢方式
蛋白质/氨基酸发酵型代谢,不依赖糖为主要能量来源;
主要底物为谷氨酸、天冬氨酸、鸟氨酸、赖氨酸、短肽。
注:可利用谷氨酸等氨基酸作为唯一能源,使其在复杂生物膜环境中具备竞争优势。
•主要代谢产物
短链脂肪酸:丁酸盐、乙酸盐、丙酸盐;
多胺:腐胺、尸胺;
挥发性硫化物:H2S(与口臭相关)。
•代谢协同
具核梭杆菌具有代谢整合作用:
可以为Streptococcus gordonii提供鸟氨酸;
为Veillonella parvula提供赖氨酸。
•生物学意义
–改变局部微环境(pH、氧化还原状态);
-可能促进致病菌(如P.gingivalis)生长;
–调控生物膜结构。
5
耐药性
•抗生素敏感性
一般对甲硝唑、碳青霉烯类敏感;
对部分β-内酰胺敏感。
但存在耐药趋势增加。
•耐药机制
-β-内酰胺酶产生:降解抗生素;
-生物膜保护:抗生素难以穿透、代谢低活性状态增强耐受。
-并且可能与其他菌协同,共享保护机制。
6
与其他菌群的相互作用
•“承上启下”的中间菌
具核梭杆菌作为牙科生物膜中的关键“桥接”物种,介导早期定殖者如链球菌属与晚期定殖者如牙龈卟啉单胞菌和齿螺旋体的共聚。
其通过表面黏附蛋白(如RadD等)和广谱凝集能力,构建复杂生物膜结构,并促进菌群生态成熟。
F.nucleatum在牙菌斑中充当桥接生物
编辑
doi: 10.1111/prd.12426.
并且其位于生物膜中间层,连接表层需氧菌和深层厌氧菌。
•协同致病
可以与以下菌协同,导致致病性增强:
–Porphyromonas gingivalis;
–Tannerella forsythia。
具核梭杆菌的相互作用网络
编辑
Gao X,et al.Gut Pathog.2025
•与益生菌的拮抗
一些益生菌如Lactobacillus rhamnosus可抑制具核梭杆菌。
具核梭杆菌(Fusobacterium nucleatum)在人体中可能具有双重作用。在正常范围内,其可以作为一种人体共生菌存在。
然而,当生态失衡(菌群失调)时,这个菌就会变成一位危险的”致病菌”。越来越多的证据表明,具核梭杆菌不仅与牙周病、口臭、牙髓感染等口腔疾病密切相关,还能通过血液循环”远征”到肠道、心血管甚至胎盘,参与炎症性肠病(IBD)、结直肠癌(CRC)、心血管疾病(CVD)和不良妊娠结局等全身性疾病。
那么,具核梭杆菌是靠什么”武器”致病?它的致病逻辑可以概括为一条主线:
先黏附 → 再侵入 → 诱导炎症 → 调控免疫 → 重塑微环境 → 促进慢性病。
下面,我们详细描述具核梭杆菌的各类致病因子及其作用机制。
Part 1
致病因子(有哪些“武器”)
1
黏附和侵入类因子
⑴FadA(最重要的核心因子)
能结合人体细胞上的E-cadherin(细胞连接蛋白)
会发生什么?
• 细菌更容易黏在细胞上;
• 甚至可以钻进细胞内部;
• 同时激活β-catenin信号(促进细胞增殖)。
⑵Fap2蛋白
可以识别肿瘤细胞表面的糖结构,更关键的是结合免疫细胞上的 TIGIT受体。
结果:
• 让免疫细胞“看不见它”;
• 抑制NK细胞、T细胞。
⑶RadD等黏附蛋白
可以简单理解为“胶水”,让它能黏住其他细菌和宿主细胞。
作用:
• 把不同细菌“粘在一起”;
• 形成复杂菌群。
具核梭杆菌的致病因子
编辑
doi: 10.3389/froh.2022.831607.
2
炎症与毒性因子
⑴LPS(脂多糖)
所有革兰阴性菌都有,但Fusobacterium nucleatum作用很强。能够激活人体“报警系统”:TLR4 → NF-κB通路。
结果:
• 大量释放炎症因子:IL-6、IL-8、TNF-α。
⑵细胞毒性代谢产物
包括:硫化氢(H₂S)、氨、有机酸。
作用:
• 直接损伤组织;
• 破坏细胞。
3
代谢类致病因子
⑴丁酸盐
具核梭杆菌(Fusobacterium nucleatum)可在牙龈下菌斑、牙周袋以及炎症相关的肠道微环境中,通过氨基酸发酵产生短链脂肪酸(short-chain fatty acids, SCFAs),包括丁酸盐、乙酸盐和丙酸盐。与传统的共生性丁酸产生菌,如 Faecalibacterium prausnitzii、Roseburia spp. 和 Eubacterium rectale 等主要通过膳食纤维发酵产生丁酸盐不同,F. nucleatum 相关 SCFAs 的产生通常发生在炎症性、厌氧性和微生态失衡的局部环境中。
在健康结肠腔内,共生菌来源的丁酸盐通常可达到低毫摩尔至十余毫摩尔水平,是结肠上皮细胞的重要能量来源,有助于维持上皮屏障完整性,并通过调节免疫细胞功能、抑制组蛋白去乙酰化酶以及促进调节性 T 细胞分化等机制发挥抗炎作用。
然而,在 F. nucleatum 富集或主导的微环境中,丁酸盐的生物学效应可能发生改变。此类环境往往同时存在脂多糖、FadA、RadD 等黏附因子以及促炎细胞因子。当上皮屏障受损或局部炎症已被激活时,SCFAs,尤其是丁酸盐,可能通过影响免疫细胞代谢、表观遗传调控和炎症信号通路,进一步放大局部炎症反应。其效应取决于产生部位、局部浓度、宿主屏障状态以及是否伴随其他细菌毒力因子,而不能简单归因于 SCFAs 本身的“有益”或“有害”属性。
因此,SCFAs 的潜在致病作用具有明显的情境依赖性:它并非源于其固有毒性,而可能与其在不适当部位的产生、异常局部浓度的积累,以及与 F.nucleatum 其他毒力决定因子的协同作用有关。这些代谢和炎症相互作用可能有助于解释严重牙周炎、肠道屏障功能障碍以及全身炎症负担增加之间的关联,并为理解口腔—肠道—全身炎症轴提供一定机制依据。
⑵多胺
可以理解为:“生物膜催化剂”,来源:Fn从其他细菌那里“拿原料”(氨基酸)、自己加工成多胺。
作用:促进致病菌(如牙龈卟啉单胞菌)生长更快、扩散更强。通俗说:它能够“喂养坏菌”。
4
生物膜相关因子
具核梭杆菌具有强大的生物膜形成能力,是典型的“桥梁菌”,能够连接链球菌等早期定植菌与牙龈卟啉单胞菌等晚期致病菌。
结果:促进复杂牙菌斑生物膜的形成。
5
免疫调控因子
⑴Fap2–TIGIT机制
可以抑制免疫细胞杀伤。
⑵诱导免疫偏向
让巨噬细胞变成:M2型(偏免疫抑制)。
结果:
• 炎症持续,但清除不了有害菌。
Part 2
它是怎么一步步致病的?
①第一步:先定植
用 FadA、RadD 等黏附蛋白,粘在牙齿、牙龈或肠道上。
②第二步:开始形成生物膜
具核梭杆菌作为桥梁菌,可以把不同细菌连接起来,建立复杂生物膜,使之更抗药、更难清除。
③第三步:制造“混乱环境”(炎症+代谢)
通过脂多糖诱导持续炎症,代谢产物损伤组织,多胺促进其他致病菌生长,从而形成紊乱的微环境。
④第四步:破坏“防线”(屏障破坏)
破坏上皮细胞连接并增加通透性,使细菌更易侵入血液或深层组织。
⑤第五步:躲避免疫
通过Fap2抑制免疫细胞功能,实现免疫逃逸,使机体难以清除感染。
⑥最终:推动疾病发展
在牙周:牙龈炎 → 牙周炎
在肠道:屏障破坏 → 炎症性肠病
在肿瘤中:促细胞增殖、加强免疫逃逸
一句话总结
具核梭杆菌(Fusobacterium nucleatum)通过黏附侵袭、免疫逃逸、炎症激活、代谢重编程及生物膜桥接作用,多层面协同破坏宿主稳态,最终驱动感染、慢性炎症及疾病的发生。
具核梭杆菌(Fusobacterium nucleatum)与多种口腔疾病密切相关,包括牙周病、口臭、牙髓感染、口腔癌,在这些疾病的发生与发展过程中发挥着重要作用。
与F.nucleatum相关的口腔疾病
编辑
doi: 10.3389/fcimb.2022.815318.
1
F.nucleatum与牙周病的关联
牙周病累及牙齿支持组织,包括牙龈炎和牙周炎,其发生以牙菌斑为主要致病因素;F.nucleatum是牙周组织中的优势菌,与牙周炎的发生密切相关。
↘ 牙周疾病患者携带F.nucleatum率及丰度更高
编辑
影响因子:8.134
研究表明,F. nucleatum在牙周健康个体和慢性牙周炎患者中均可检测到,但在牙周炎患者中更为常见且丰度更高,且其数量随疾病严重程度、炎症进展及牙周袋深度增加而升高。
一组实验人员通过PCR检测发现,慢性牙周炎患者F.nucleatum检出率为100%,健康人群为86.21%,前者含量更高。另一项研究显示,其在牙龈炎、牙周炎及健康人群中的检出率分别为57.1%、68%和37.8%。
此外,F. nucleatum在龈下菌斑中的含量显著高于其他口腔部位,提示其可能参与牙周炎的发生与进展。
↘ F.nucleatum可能在牙周炎中发挥关键作用
Fusobacterium nucleatum在牙周炎中发挥关键的“桥梁”和协同致病作用。一方面,它通过黏附蛋白连接早期定植菌与晚期致病菌,促进复杂牙菌斑生物膜的形成并增强菌群致病性。
另一方面,其脂多糖等成分可持续激活宿主炎症反应,诱导多种炎症因子释放,导致牙周组织破坏。同时,F. nucleatum还能通过破坏上皮屏障、调控免疫反应及代谢产物(如多胺、短链脂肪酸)重塑局部微环境,进一步促进致病菌生长并维持慢性炎症状态,从而加速牙周炎的发生与发展。
2
F.nucleatum与口臭的关联
口臭是一种常见的口腔状况,可分为口内性和口外性,其中口内口臭主要由厌氧菌产生的挥发性硫化合物(如硫化氢、二甲硫化物和甲基巯烷)引起。研究表明,口臭与舌苔中富集的牙周相关菌密切相关。
↘ F.nucleatum可能通过挥发性硫化物导致口臭
研究发现,F.nucleatum在口臭患者中显著增多。研究表明,其丰度与舌苔评分、口臭感知值、甲基硫醇及挥发性硫化物(VSC)浓度呈正相关,并与口腔细菌总量及相关致臭菌共同升高。
多项研究进一步证实,F.nucleatum与P. gingivalis及Prevotella intermedia等共同促进VSC生成,是口臭的重要致病因素;其在舌背生物膜中的比例亦明显升高。此外,心理压力和焦虑可能通过影响F.nucleatum而增加VSC释放。
↘ F.nuclearum相关性口臭的治疗
清洁舌背可显著降低F. nucleatum及挥发性硫化物水平。多数口臭可通过充足饮水、良好口腔卫生、深度舌清洁及必要时使用有效漱口水得到改善。
鉴于口臭与包括F. nucleatum在内的特定口腔菌群密切相关,已开发多种靶向口腔微生物群的干预措施,如疫苗、抗体、植物提取物、化学制剂、益生菌及光动力疗法,用于口臭的治疗与管理。
3
F.nucleatum与牙髓感染的关联
多项研究在牙髓感染样本中检测到F.nucleatum且其丰度显著升高,提示其在牙髓感染的发生与进展中具有重要作用。
↘ F.nucleatum在牙髓相关感染高频检出
编辑
影响因子:2.812
多项研究表明,F. nucleatum广泛存在于牙髓炎及根尖周炎相关感染中。一项研究发现其在有症状与无症状牙髓感染中均为常见菌种之一。但通过16S rRNA测序证实,F. nucleatum在原发性和继发性根尖周炎中均为最常见且丰度较高的菌群,但在继发感染中相对减少。
2012年一项研究将其列为退化根管中的主要菌群之一。2017年和2021年的研究进一步指出,F.nucleatum在根管治疗失败及根尖周病变中高频检出,并与较大病变范围相关。
此外,其可与粪肠球菌共聚,可能协同参与感染过程。还在牙周-牙髓联合病变中检测到其高丰度存在。
↘ F.nucleatum可能诱导炎症促进牙髓病变
F.nucleatum在牙髓感染中可能通过两方面发挥作用:其一,具有较强的碱耐受性,尤其在生物膜状态下,可在碱性根管环境及消毒处理后存活,从而持续参与感染过程。
其二,其内毒素可激活巨噬细胞TLR-4通路,进一步通过p38 MAPK和NF-κB信号促进IL-6、IL-10等炎症因子释放,并上调IFN-γ和TNF-α,诱导RANKL表达和破骨细胞活化,导致根尖周炎症及骨吸收,加速病变进展。
因此,F.nucleatum不仅有助于感染持续存在,还通过诱导炎症反应促进牙髓及根尖病变的发展。
4
F.nucleatum与口腔癌的关联
口腔癌是全球常见癌症,其中约90%为口腔鳞状细胞癌(OSCC)。尽管手术、放疗和化疗不断进步,其发病率仍呈上升趋势,5年生存率约50%–60%。约15%的OSCC病因不明,可能与病毒、真菌及细菌感染有关。细菌相关的慢性炎症被认为是重要致癌因素之一。
有必要深入研究相关微生物在OSCC发生发展中的作用机制,以期为其预防、早期诊断和治疗提供依据。
↘ F.nucleatum在口腔鳞状细胞癌中显著升高
编辑
影响因子:4.235
F.nucleatum是口腔常见的机会致病菌,近年来被认为与口腔鳞状细胞癌(OSCC)密切相关。多项16S rRNA测序研究显示,其在OSCC患者中的丰度随疾病进展显著升高,并在肿瘤组织中明显富集。
菌群分析表明,Fusobacterium属在OSCC中增加,而链球菌属相对减少;同时,微生物功能改变可能通过抑制具有抗肿瘤作用的次级代谢物合成,参与肿瘤微环境形成。qPCR及测序结果进一步证实,F. nucleatum与P. gingivalis在癌组织中含量升高,且与牙周菌群存在相关性。
此外,其在肿瘤部位的高丰度及与其他致病菌的共同富集,提示F.nucleatum可能参与OSCC的发生与发展。
↘ F.nucleatum可能增强肿瘤细胞迁徙与入侵
F.nucleatum在口腔鳞状细胞癌(OSCC)中显著富集,可能通过多种机制促进肿瘤发生发展。其可调控肿瘤相关基因表达,激活TLR信号通路及STAT3等下游分子,增强炎症反应并促进肿瘤生长;同时通过产生硫化氢及影响细胞周期调控(如降低p27、加速S期进入)促进肿瘤细胞增殖。
此外,F. nucleatum可通过上调MMPs、诱导上皮-间质转化(EMT)及激活相关信号通路(如Akt、FAK)增强肿瘤细胞迁移和侵袭能力。在肿瘤微环境中,其还可通过Fap2等蛋白抑制T细胞和NK细胞活性,促进免疫逃逸。进一步研究显示,其丰度与化疗耐药及疗效不佳相关。
总体而言,F. nucleatum通过促进增殖、侵袭、炎症反应及免疫调控,在OSCC发生发展中发挥重要促进作用。
具核梭杆菌(Fusobacterium nucleatum)不仅是口腔内重要的机会致病菌,在牙周病、口臭、牙髓感染等口腔疾病中发挥关键作用,近年来也被证实与多种口腔外疾病密切相关。
随着微生物组研究的深入,研究者逐渐发现其可通过血液传播、炎症调控及免疫干预等途径参与全身性疾病的发生发展,如炎症性肠病、结直肠癌、心血管疾病及不良妊娠结局等。
1
F.nucleatum与炎症性肠病
F. nucleatum在炎症性肠病(IBD)患者肠道活检中的检出率升高,提示其具有持续定植和潜在促炎作用。
↘ F.nucleatum会诱导黏膜炎症
研究表明,F.nucleatum可通过阶段特异性机制参与IBD发生发展:首先在肠黏膜持续定植,作为后续致病过程的基础;随后通过侵入肠上皮细胞并破坏屏障功能,促进黏膜炎症。
这一过程与其生物膜形成能力相关,主要由外膜黏附素RadD介导,同时黏附蛋白FadA增强细菌与宿主细胞的结合和侵入。FadA还可激活E-cadherin/β-连环蛋白信号通路,诱导炎症反应并促进上皮增殖,将慢性炎症与结直肠癌风险相联系。
↘ 破坏紧密连接、加剧炎症和组织损伤
此外,F.nucleatum可破坏紧密连接,增加肠道通透性,促进细菌及抗原转位,诱导以Th17为主的免疫反应,并通过中性粒细胞募集及NETs释放加剧炎症和组织损伤。
其黏膜负荷与疾病活动度、内镜评分、粪便钙卫蛋白及CRP水平呈正相关,提示其可能作为IBD活动的生物标志物。进一步地,屏障破坏还可引发全身效应,促进微生物及内毒素入血,激活血小板和内皮细胞,参与血栓炎症过程。
总体而言,F.nucleatum依赖RadD、FadA等因子,通过促进定植、破坏屏障及激活免疫反应,在炎症性肠病及相关疾病中发挥重要作用。
2
F.nucleatum与结直肠癌
近年来,具核梭杆菌已成为结直肠癌发生中一个有说服力的病因和预后因素。
↘ 具核梭杆菌的一个分支(Fna C2)常富集于结直肠癌组织
2024年3月发表在Nature的一篇研究,通过收集健康人和结直肠癌患者的一系列Fn菌株,并对上述菌株进行分析,发现Fn亚种中的一个分支(Fna C2)富集于结直肠癌组织,并且Fna C2在结直肠癌患者的粪便样本中检出水平更高。
编辑
影响因子:42.778
↘ F.nucleatum通过多条通路影响结直肠癌发展
从机制上看,F. nucleatum通过多条通路协同促进结直肠癌(CRC)发展:FadA与E-cadherin结合,激活β-连环蛋白信号并驱动致癌基因表达;Fap2与肿瘤细胞表面Gal-GalNAc结合,促进免疫逃逸及肿瘤微环境重塑。
F.nucleatum利用的多种机制加速肿瘤进展
编辑
doi: 10.3390/cancers17203348.
此外,其在肠隐窝中的深度定殖可通过激活LY6A并上调RPS14,促进类癌干细胞形成。除直接作用于上皮外,F. nucleatum还通过激活NF-κB通路诱导肿瘤相关巨噬细胞向M2型极化,并促进IL-8、CXCL1、IL-1β、IL-6和TNF-α等细胞因子释放,从而维持慢性炎症和免疫抑制微环境。
结直肠癌和心血管疾病中由具核梭杆菌驱动炎症
编辑
doi: 10.3390/cancers17203348.
总体而言,现有证据表明F.nucleatum在结直肠癌的发生、进展及耐药中发挥重要作用,涉及上皮信号、干性调控、免疫调节和代谢重编程,不仅具有预后价值,也有望成为未来防治的潜在靶点。
3
F.nucleatum与心血管疾病
具核梭杆菌传统上被视为牙周病的重要病原体,但其致病作用已扩展至全身,尤其与心血管疾病(CVD)密切相关。
↘ 动脉硬化部位可以检测到F.nucleatum的DNA
在牙周病患者中,F.nucleatum常在牙龈出血、刷牙或牙科操作后由口腔进入血流。研究已在颈动脉和冠状动脉粥样硬化斑块中检测到其DNA,提示其参与血管病变;尸检亦发现突发性心脏死亡患者的冠状动脉斑块常含牙周致病菌DNA,其中以F.nucleatum最为一致。
此外,该菌还可致感染性心内膜炎,尤其见于既往牙周感染者。这些证据表明其可突破黏膜屏障,引发菌血症,并在心血管组织中持续诱导炎症和损伤。
↘ F.nucleatum加速泡沫细胞形成动脉粥样硬化微环境
F.nucleatum的重要毒力机制之一是通过FadA等表面蛋白黏附并侵入内皮细胞。FadA与VE-cadherin结合,破坏内皮连接并增加通透性;进入细胞后激活TLR2/4,启动NF-κB和MAPK通路,上调IL-6、TNF-α、IL-1β及VCAM-1、ICAM-1、E-选择素,促进白细胞黏附与迁移,营造有利于单核细胞向泡沫细胞转化的动脉粥样硬化微环境。
此外,其脂多糖具有强内毒素活性,可通过激活NADPH氧化酶增强氧化应激,增加活性氧生成,促进LDL氧化(oxLDL),既加速泡沫细胞形成,也削弱斑块稳定性并提高破裂风险,从而揭示慢性牙周感染与全身动脉粥样硬化进展之间的机制联系。
↘ F.nucleatum与多种心血管疾病相关
在急性冠状动脉综合征中,其诱导的细胞因子和活性氧释放可增加斑块破裂和血栓形成风险;临床上,心肌梗死患者中牙周致病菌(包括F.nucleatum)检出率更高。
此外,该菌亦可致感染性心内膜炎,尤其见于口腔卫生差或瓣膜异常者。慢性感染还可通过持续炎症和微血管功能障碍促进心肌重构并导致心力衰竭;动物研究表明其长期暴露可引起左心室功能下降和心肌纤维化增加。
总体而言,F.nucleatum通过系统性免疫炎症通路影响血管完整性和心肌健康。将具核梭杆菌视为心血管疾病促进因素具有重要治疗意义。临床上,应整合牙科与心血管管理:心血管患者进行牙周筛查,牙周患者评估心血管风险,体现口腔与心血管健康的整体关联。
4
F.nucleatum与不良妊娠结局
↘ 口腔中的F.nucleatum可迁移至胎盘
近年来,基于16S rRNA方法在胎盘和胎儿组织中检测到F. nucleatum。研究表明,胎盘中的该菌多源自口腔龈下菌斑;临床分离显示,羊水和胎盘菌株与父母龈下菌株一致,而非来自下生殖道。动物实验亦证实,将唾液或龈下菌斑接种小鼠可导致胎盘感染口腔共生菌(包括F. nucleatum),提示口腔细菌可迁移至胎—胎盘单元
↘ F.nucleatum可能会导致早产和足月流产
动物研究表明,F. nucleatum可致不良妊娠结局。研究发现,向孕鼠尾静脉注射该菌可在72小时内引发早产或足月流产,且细菌主要局限于子宫而不发生全身扩散。研究进一步证实,其通过激活TLR4介导的胎盘炎症反应诱导胎死。
该菌在胎盘的定植依赖其黏附因子,其中FadA尤为关键。FadA与VE-cadherin结合可破坏细胞连接、增加内皮通透性,促进细菌穿越内皮屏障。这些机制解释了其跨越胎盘屏障的能力,亦强调孕期口腔健康与牙科护理的重要性。
!
具核梭杆菌菌株与疾病的关联
近期系统基因组学表明,F. nucleatum并非单一物种,而是由遗传差异明显、毒力潜能不同的多个亚种和分支构成。全基因组及rpoB、16S rRNA等测序已鉴定四个典型亚种:nucleatum、polymorphum、vincentii和fusiforme,各具特定基因特征与生态偏好。
其中,nucleatum多与口腔生物膜和慢性牙周炎相关;polymorphum遗传多样性更高,常见于口外部位;vincentii多见于急性感染和脓肿;fusiforme研究较少但具独特基因特征。
《自然》近期研究进一步发现两个新分支Fna C1和Fna C2,其中Fna C2在结直肠癌患者组织和粪便中显著富集,在健康人中罕见。比较基因组学显示,Fna C2携带更多毒力因子(如fap2、cmpA、fusolisin),并具有独特形态与代谢特征;体内实验表明其可促进结直肠腺瘤形成并改变宿主代谢谱,支持其在肿瘤发生中的作用。
这些发现强调菌株层面解析对理解F. nucleatum—宿主互作的重要性,并表明不同谱系致病性存在显著差异。临床上,识别如Fna C2等高毒力分支有助于诊断优化、风险分层及靶向治疗;其在炎症性及心血管等其他疾病中的作用仍需进一步研究。
具核梭杆菌(F. nucleatum)的治疗应以“控制感染源—调节微生态—干预炎症反应”为核心,采取多层面的综合策略。
涉及具核梭杆菌的治疗方法
编辑
Jiang SS,et al.Nat Rev Microbiol.2026
1
传统抗菌策略
①抗生素
传统牙周治疗通常采用全身或局部给药抗生素,如甲硝唑、阿莫西林或多西环素,这些药物对厌氧革兰氏阴性菌(包括具核梭杆菌)表现出活性。
②噬菌体与窄谱抗菌肽
然而,广谱抗生素的过度使用存在耐药性发展和微生物群失调的风险,强调了针对性方法的重要性。在这方面,窄谱抗菌肽(AMPs)和噬菌体基疗法正被视为有前景的候选药物,能够选择性地消除具核梭杆菌,同时不破坏共生菌群。
③信号抑制剂和拮抗剂
除了直接消灭细菌外,宿主反应的药理调控同样重要。Toll样受体4(TLR4)信号抑制剂和NF-κB途径拮抗剂已在实验模型中显示出减缓由具核梭杆菌诱导的血管炎症的能力。
同样,心血管医学中广泛使用的他汀类药物和血管紧张素转换酶(ACE)抑制剂通过减少全身炎症和氧化应激对内皮功能产生多效作用,间接抵消具核梭杆菌的有害血管影响。
值得注意的是,他汀类药物已被证明能减少细菌对内皮细胞的附着并调节单核细胞激活,表明其在调控微生物血管定植中具有意想不到的佐剂作用。
2
营养策略与饮食调节
①富含多酚的饮食
营养干预作为调节口腔及全身微生物群(包括F.nucleatum)的长期策略日益受到关注。富含多酚的饮食(如绿茶儿茶素、白藜芦醇和姜黄素)可通过抑制细菌黏附、生物膜形成及群体感应发挥抗菌作用。
体外研究显示,表没食子儿茶素没食子酸酯(EGCG)可抑制F. nucleatum生长,并减少其诱导的IL-6和TNF-α释放,从而减弱炎症反应。
②多不饱和脂肪酸
多不饱和脂肪酸(PUFAs),尤其是二十碳五烯酸(EPA)和二十二碳六烯酸(DHA),具有抗炎和促消解特性。它们被纳入细胞膜调节脂筏组成并抑制TLR信号,从而减少对具核梭杆菌衍生脂多糖的血管炎症反应。
牙周炎临床研究表明,Ω-3脂肪酸联合机械治疗可促进牙周愈合、降低全身炎症指标,并减少细菌向心血管系统的迁移。
3
益生菌和益生元
益生元与益生菌同样具有调控作用:补充产丁酸的共生菌(如Faecalibacterium prausnitzii)或乳酸菌,通过争夺生态位和营养,抑制具核梭杆菌在肠黏膜的过度增殖。
含乳杆菌或双歧杆菌的益生菌可产生如乳酸和乙酸等抗菌代谢物,抑制其在口腔定植。此类微生态重塑有助于降低长期暴露所致的全身炎症负担。
此外,宿主导向的药理策略,包括抗氧化剂如N-乙酰半胱氨酸(NAC)或线粒体靶向化合物,可能与微生物群调节饮食协同,以控制由具核梭杆菌触发的氧化应激和系统免疫激活。
总的来说,应结合遗传背景、饮食习惯及个体微生物群特征实施个性化干预。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Jiang SS, Chen YX, Fang JY. Fusobacterium nucleatum: ecology, pathogenesis and clinical implications. Nat Rev Microbiol. 2026 Mar;24(3):197-214.
Quagliariello V, Forte P, Ciappina G, Colarusso L, Giorgi C, Fiorica F, Bottari A, Di Mauro G, Maurea N, Berretta M. Fusobacteriumnucleatum: Pathophysiological and Clinical Involvement in Inflammatory Bowel Diseases, Colorectal Cancer and Cardiovascular Diseases. Cancers (Basel). 2025 Oct 17;17(20):3348.
Chen Y, Huang Z, Tang Z, Huang Y, Huang M, Liu H, Ziebolz D, Schmalz G, Jia B, Zhao J. More Than Just a Periodontal Pathogen -the Research Progress on Fusobacterium nucleatum. Front Cell Infect Microbiol. 2022 Feb 3;12:815318.
Groeger S, Zhou Y, Ruf S, Meyle J. Pathogenic Mechanisms of Fusobacterium nucleatum on Oral Epithelial Cells. Front Oral Health. 2022 Apr 5;3:831607.
Yang X, Zhang S, Ning T, Wu J. Fusobacterium nucleatum in Health and Disease. MedComm (2020). 2025 Nov 9;6(11):e70465.
Brennan CA, Garrett WS. Fusobacterium nucleatum – symbiont, opportunist and oncobacterium. Nat Rev Microbiol. 2019 Mar;17(3):156-166.
Gao X, Cao F, Li Y, Huang J, Hu X, Li Z. Fusobacterium nucleatum: a transboundary pathogen in host-microbiota networks. Gut Pathog. 2025 Nov 20;17(1):92.
Han YW. Fusobacterium nucleatum: a commensal-turned pathogen. Curr Opin Microbiol. 2015 Feb;23:141-7.
Alon-Maimon T, Mandelboim O, Bachrach G. Fusobacterium nucleatum and cancer. Periodontol 2000. 2022 Jun;89(1):166-180.
Yang CY, Yeh YM, Yu HY, Chin CY, Hsu CW, Liu H, Huang PJ, Hu SN, Liao CT, Chang KP, Chang YL. Oral Microbiota Community Dynamics Associated With Oral Squamous Cell Carcinoma Staging. Front Microbiol. 2018 May 3;9:862.
谷禾健康
你是否想过,一颗普通的红洋葱、一个清脆的苹果,或者一杯温热的绿茶中,究竟藏着怎样的健康密码?答案指向一种被科学家反复研究的天然活性成分——槲皮素。
作为黄酮类化合物家族中分布最广、含量最丰富的成员之一,槲皮素是植物用来抵御紫外线、病菌和氧化损伤的”保护伞”,而当人类将其摄入体内后,它同样展现出令人惊讶的生物学活性。
大量研究表明,槲皮素的核心能力在于抗氧化与抗炎,并由此延伸出多方面的健康益处:它能中和自由基、激活细胞自身的抗氧化系统,守护心血管的通畅与弹性;它能穿越血脑屏障,为神经元撑起保护伞,延缓大脑衰老;它还能调节免疫反应、缓解过敏与哮喘;并在抗肿瘤和改善代谢紊乱方面展现出令人期待的潜力。可以说,槲皮素是一位”多面手”,在心血管、神经、免疫、代谢等多个系统中发挥着保护作用。
然而,槲皮素并非”吃多少就能用多少”。它的口服生物利用度极低,水溶性差、首过代谢广泛,真正进入血液循环的原形槲皮素微乎其微。那么,是什么在决定槲皮素能否真正发挥作用?
答案藏在我们的肠道里。肠道菌群是槲皮素从”吃进去”到”用得上”的关键枢纽——它们分泌的糖苷水解酶将大分子、难吸收的槲皮素糖苷”拆解”为小分子、易吸收的活性苷元和酚酸代谢物,如二羟苯乙酸(DOPAC)等。没有这些微生物的”加工”,大量槲皮素只能作为无效成分随粪便排出。正因如此,个体间肠道菌群组成的差异,导致了槲皮素效果的”天壤之别”。
接下来,本文将带你全面了解槲皮素的健康益处、食物来源、肠道菌群的深层影响,以及如何才能更科学有效地补充槲皮素?让你摄入的每一口槲皮素都发挥出最大的价值。
槲皮素是什么?
槲皮素(Quercetin),又名栎精或槲皮黄素,是一种广泛存在于植物性食物中的天然化合物,属于黄酮类化合物大家族中的黄酮醇子类(这一类还包括山奈酚、杨梅素等),是人类膳食中重要的功能性植物成分之一。
注:槲皮素是植物界分布最广、最常见的黄酮醇类化合物。
槲皮素本身不提供能量,而是一种植物化学物质(植物次生代谢产物)。植物用它来对抗紫外线、病菌和氧化损伤。简单来说,它像是植物的“保护伞”,同时也赋予了果蔬鲜艳的颜色。
当人摄入后,它会在体内发挥多种生物学作用,因此被认为是一种具有潜在健康价值的天然活性成分。
✔ 槲皮素—分子结构
从化学结构上看,槲皮素具有典型的三环“黄酮骨架”(A、B两个芳香环与中间C环相连),并带有多个羟基(-OH),这些基团赋予其清除自由基的活性。
在自然界中,槲皮素多以与糖结合的糖苷形式存在(如槲皮素-3-O-葡萄糖苷),而去糖后的苷元才是纯槲皮素。糖苷形式水溶性更好、便于植物储存,苷元则更易穿透细胞膜但水溶性较差。
槲皮素的作用主要来自两大核心能力:抗氧化和调节炎症反应,并由此延伸至多个健康领域。下面我们整理了文献中较一致的结论,不过要注意:多数属于实验或临床前研究,具体效果强弱因人而异。
槲皮素的潜在应用
编辑
doi: 10.3390/ph16071020.
1
抗氧化作用(最基础、最重要)
我们的身体每天都会产生“自由基”——它们是代谢的副产物,但过多时会破坏细胞里的DNA、蛋白质和脂肪,导致“氧化应激”(和衰老、慢性病密切相关)。
✔ 中和自由基,减少氧化损伤
槲皮素的羟基能直接“中和”自由基(比如超氧阴离子O₂⁻、一氧化氮NO),还能激活身体自身的“抗氧化系统”:通过Nrf2-ARE信号通路(相当于细胞的“抗氧化开关”),让细胞产生更多“内源性抗氧化剂”(比如超氧化物歧化酶SOD、谷胱甘肽),从根源减少氧化损伤。
槲皮素的抗氧化、抗炎作用
编辑
doi.org/10.1002/fft2.50
此外,它还能“螯合”多余的铁离子——铁过量会引发自由基爆发,槲皮素能把铁“绑住”,避免细胞被“氧化灼伤”。
2
抗炎作用(几乎所有慢病的核心)
慢性炎症是很多疾病的根源之一,而槲皮素可以:
•抑制炎症通路:NF-κB、NLRP3炎症小体;
•降低炎症因子(如TNF-α、IL-6);
•调节免疫反应。
通俗理解,槲皮素可以把身体里“长期低烧的炎症状态”降下来。
槲皮素的抗炎信号通路
编辑
doi: 10.3390/ph16071020.
✔ 健康意义
槲皮素的这一特性对多种疾病可能具有潜在的辅助改善作用:
•例如慢性炎症性疾病等长期炎症相关问题;
•以及与代谢紊乱相关的代谢综合征;
•还包括涉及中枢或外周神经系统炎症反应的神经炎症等情况。
3
守护心血管,降低“血管硬化”风险
心血管疾病的关键诱因是血管内皮损伤(内皮是血管内壁的“保护膜”)和低密度脂蛋白(LDL)胆固醇氧化(氧化的LDL会钻进血管壁形成斑块)。
槲皮素的作用包括:
✔ 促进血管舒张:通过增加“一氧化氮(NO)”的释放,让血管平滑肌放松,降低血压(尤其是高血压或前期高血压患者,每天500mg以上剂量效果更明显)。
✔ 调节血脂:激活肝脏里的“胆固醇7α-羟化酶”(把胆固醇转化为胆汁酸排出),还能促进“反向胆固醇转运”(把血管壁的胆固醇运回肝脏代谢)。
✔ 抗血栓:抑制血小板聚集,减少血管堵塞的风险。
通俗理解:可以把槲皮素看作帮助血管维持“通畅、柔软且更有弹性”,从而降低发生堵塞的风险,让血液在血管中流动更加顺畅稳定。
4
保护神经,延缓大脑衰老
阿尔茨海默病、帕金森病等疾病的核心是神经元死亡(和氧化应激、淀粉样蛋白沉积有关)。槲皮素能穿过“血脑屏障”(很多药物进不去的大脑保护膜),通过:
✔ 抗氧化:减少多巴胺代谢产生的自由基(帕金森病患者脑内多巴胺能神经元易受损)。
✔ 抗淀粉样蛋白:阻止β-淀粉样蛋白(Aβ)聚集形成“老年斑”(阿尔茨海默病的典型病理特征)。
✔ 调节神经信号:激活MAPK/PI3K-Akt通路,保护神经元的结构和功能,改善记忆障碍。
编辑
doi: 10.3390/ijms24076328.
因此,槲皮素可能在一定程度上改善认知功能表现,并可能对延缓神经退行性疾病的发展过程产生帮助,如阿尔茨海默病、帕金森等相关疾病。
5
抗肿瘤潜力(研究较多)
癌症的本质是“细胞失控增殖”,而槲皮素能“精准打击”癌细胞,主要通过以下手段。
槲皮素对癌症主要信号通路的影响
编辑
doi: 10.3390/molecules29051000.
✔ 诱导凋亡:激活“半胱天冬酶(Caspase-3/9)”,让癌细胞“主动自杀”。
✔ 阻断增殖信号:抑制PI3K/AKT通路(癌细胞的“生长油门”),阻止它们无限分裂。
✔ 抗转移:减少“基质金属蛋白酶(MMP)”的分泌,不让癌细胞突破“围墙”转移到其他器官。
✔ 表观遗传调控:通过影响基因表达(比如关闭致癌基因、开启抑癌基因),抑制肿瘤的发生发展。
文献提到,槲皮素对乳腺癌(MCF-7细胞)、前列腺癌(LNCaP细胞)、胃癌(AGS细胞)等多种癌细胞都有抑制作用,甚至能和化疗药物(如SN-38)联用,增强药效并减少副作用。
但必须强调:目前主要是实验和辅助研究,还不能替代癌症正规治疗。
6
缓解过敏与哮喘,减轻呼吸道炎症
哮喘和过敏的核心是免疫系统过度反应:肥大细胞会释放组胺、白三烯等“炎症介质”,导致气道肿胀、黏液增多、呼吸困难。
✔ 槲皮素抑制组胺释放,调节Th1/Th2平衡
槲皮素能“按住”肥大细胞的“兴奋度”——抑制它们释放组胺;还能调节Th1/Th2平衡(免疫系统的两种“作战模式”,过敏时Th2过强),减少炎症因子(比如TNF-α、IL-6)的产生。
动物实验显示,给哮喘模型大鼠喂槲皮素糖苷,能显著降低气道里的炎症细胞(如嗜酸性粒细胞)数量,减轻支气管的高反应性(比如遇到刺激就喘)。
7
调节代谢(肥胖、糖尿病)
肥胖是“能量过剩+慢性炎症”的结果——脂肪细胞会分泌炎症因子(如TNF-α),加重代谢紊乱。槲皮素能:
✔ 抑制“脂肪生成”:下调脂肪酸合成酶(FAS)、乙酰辅酶A羧化酶(ACC)的基因表达,减少脂肪细胞的“变胖”。
✔ 促进“脂肪分解”:增加脂肪细胞里的“脂解作用”,把储存的脂肪变成能量消耗。
✔ 调节“脂肪因子”:减少炎症因子(如TNF-α),增加“脂联素”(帮助提高胰岛素敏感性的好因子)。
✔ 激活“产热通路”:通过AMPK/PPARγ通路上调“解偶联蛋白UCP1”,让白色脂肪(储能型)变成棕色脂肪(产热型),多燃烧热量。
2型糖尿病的核心是“胰岛素抵抗”(细胞对胰岛素不敏感)和“胰岛β细胞受损”。槲皮素能通过多种途径帮血糖“归位”:
✔ 激活AMPK通路(细胞的“能量传感器”):促进肌肉细胞里的“葡萄糖转运蛋白GLUT4”跑到细胞膜上,把血液里的葡萄糖“搬”进细胞(类似二甲双胍的作用)。
✔ 保护胰岛β细胞:减少氧化应激对β细胞的损伤,促进细胞再生。
✔ 抑制“醛糖还原酶”:糖尿病患者体内葡萄糖会转化为“山梨醇”堆积在眼睛里引发白内障,槲皮素能阻断这个反应。
✔ 改善“晚期糖基化终产物(AGEs)”:减少它们对血管、神经的损伤(比如糖尿病神经病变的麻木疼痛)。
槲皮素的药理疗效
编辑
doi: 10.3390/ph16111631.
小结:槲皮素的“天然优势”
槲皮素不是“神药”,但作为植物中的“天然防御物质”,通过多靶点、多通路的方式,帮身体应对氧化、炎症、代谢紊乱等问题,在多个系统(心血管、神经、代谢、免疫等)中发挥保护作用,因此被认为具有预防慢性疾病的潜力。
并且食物中的槲皮素(比如吃红洋葱、苹果)比补充剂更安全——因为食物里的糖苷形式吸收更高效,且和其他营养成分(如维生素C、膳食纤维)协同作用。
简单来说,槲皮素是“吃出来的健康帮手”——多吃富含它的果蔬,就是在给身体的“抗氧化盾牌”和“炎症刹车”助力。
槲皮素广泛存在于多种植物性食物中,主要来源可以按类别系统整理如下:
槲皮素的主要来源
编辑
doi.org/10.1007/s43450-022-00347-6
1
蔬菜类(含量较高、最主要来源之一)
•洋葱(尤其是红洋葱、紫洋葱,含量最高之一);
•西兰花;
•芦笋;
•菠菜;
•羽衣甘蓝;
•菊苣;
•生菜(深色叶菜更高);
•辣椒(尤其是青椒);
•西红柿(含量中等)。
2
水果类
•沙棘、山楂(含量较高);
•苹果(尤其是果皮中含量较高);
•浆果类:蓝莓、蔓越莓、黑莓;
•葡萄(特别是红葡萄);
•樱桃;
•芒果、李子、葡萄柚;
•柑橘类水果(含量相对较低但普遍存在)。
3
饮品类
•茶(尤其是绿茶、红茶);
•咖啡;
•葡萄汁、柠檬汁、番茄汁;
•红酒(来源于葡萄皮中的槲皮素)。
4
谷物与种子类
•荞麦(非常重要来源,含量较高);
•全谷物(如燕麦等,含量相对较低但稳定)。
5
草本与其他植物来源
•其他洋葱属植物(如大葱、韭菜);
•香菜;
•莳萝;
•其他食用植物叶片和外皮部分(通常富集更多)。
•另外,约有100多种药用植物(如槐米、侧柏叶、高良姜、款冬花、桑寄生、三七、银杏、接骨木等)中均含有此成分。
!
补充说明
总体来看,槲皮素主要来自日常的蔬菜、水果和饮品,是一种典型的“广泛存在但分布不均”的植物活性成分。
补充槲皮素并非简单地“吃进去多少,就能利用多少”,其最终能否被有效吸收并发挥作用,还会受到多种因素的共同影响和限制。
▸ 槲皮素在人体内的吸收与利用
槲皮素在自然界中主要以糖苷形式(如槲皮素-3-O-葡萄糖苷、芦丁等)存在,其吸收过程与葡萄糖苷键密切相关。
这一点非常关键,因为:
•不同糖基 → 决定吸收路径不同;
•生物利用度差异很大。
⑴ 释放与水解(胃肠道阶段)
膳食来源:富含槲皮素的食物如洋葱、苹果等,在胃酸环境下,部分糖苷可能开始解离。
在小肠中发生两条主要路径:
①路径A:刷状缘酶水解(最重要)
酶:乳糖苷酶/β-葡萄糖苷酶(LPH等)
过程:
槲皮素糖苷 → 去糖基 → 变为“游离槲皮素”,
随后通过被动扩散进入肠上皮细胞。
②路径B:转运体介导吸收
典型转运蛋白:
SGLT1(钠依赖葡萄糖转运蛋白)
OATP(有机阴离子转运体)
某些糖苷(如槲皮素-葡萄糖苷)可直接被转运进入细胞
重点:是否带“合适糖基”,直接影响吸收效率
结肠吸收(菌群依赖途径):多糖苷(如芦丁)和未被小肠吸收的糖苷进入结肠,依赖肠道菌群分泌的糖苷水解酶将其转化为苷元(后文将重点分析肠道菌群对槲皮素的影响)。
槲皮素在肠道中的吸收、代谢和运输
编辑
doi.org/10.1002/fft2.50
⑵ 肠上皮内“首过代谢”
刚被吸收后,槲皮素几乎不会以“原形”进入血液,而是迅速被转化:
主要代谢反应:
生成:
进入血液循环的主要是“结合型代谢物”,而非原型槲皮素。
⑶ 肝脏进一步代谢(系统性转化中心)
经门静脉进入肝脏后,再次经历强化的代谢,进一步提高:
随后两条路径:
① 进入体循环 → 分布组织;
② 经胆汁 → 回肠道(肠肝循环)。
意义:
槲皮素在肝脏中吸收、代谢和运输
编辑
doi.org/10.1002/fft2.50
⑷ 分布与排泄
代谢产物进入血液循环,分布至器官:
•肝、肾(最高)
•心、肺;
•脑(可跨血脑屏障)。
槲皮素吸收、代谢和体内消除过程
编辑
doi.org/10.1002/fft2.50
最终通过尿液(约5-10%)和胆汁(大部分)排泄。胆汁排泄的代谢物可能进入肠肝循环,再次被肠道菌群水解,延长作用时间。
▸ 槲皮素吸收利用中存在的主要问题
①极低的水溶性与化学不稳定性:槲皮素苷元脂溶性高但水溶性极差,且在生理pH下易氧化降解,这直接限制了其游离形式的生物利用度。
②广泛的首过代谢:如文献中所述,即使摄入高剂量(如50g洋葱或375mL茶),血浆中几乎检测不到原形槲皮素,全是代谢产物,这降低了其直接生物活性。
③吸收的饱和性:小肠的SGLT1转运体容量有限。当摄入高剂量时,吸收率可能反而下降。
④个体差异巨大:不同个体的肠道菌群组成、代谢酶活性(如COMT)差异导致对同一食物来源的槲皮素响应千差万别。
编辑
▸ 肠道菌群如何影响槲皮素的吸收利用?
肠道菌群对槲皮素的吸收利用并非简单的“辅助”,而是决定其最终生物活性的“重要开关”。这个过程本质上是菌群将大分子、难吸收的槲皮素糖苷“拆解”成小分子、易吸收且具有新活性的代谢产物的过程。
槲皮素在食物中大多以糖苷形式(如芦丁、异槲皮苷)存在。这些糖苷分子量大、极性高,无法直接通过小肠上皮细胞被动扩散吸收。如果肠道菌群缺失,这些物质将作为“无效成分”随粪便排出。菌群的作用就是通过酶切和裂解,将其转化为苷元和酚酸,使其具备跨膜吸收能力。
①第一步:去糖基化(活化)
这是吸收的前提。菌群分泌的糖苷水解酶切掉槲皮素分子上的糖链(如葡萄糖、鼠李糖),释放出活性苷元。
关键菌群包括以下几类:
•拟杆菌属(Bacteroides):如 B.uniformis, B.ovatus,擅长产生广谱糖苷酶。
•乳杆菌属(Lactobacillus)与双歧杆菌属(Bifidobacterium):部分菌株可产生β-葡萄糖苷酶/鼠李糖苷酶。
•大肠杆菌(E.coli)与肠球菌(Enterococcus):部分菌株也具备此功能。
具体作用:将芦丁→ 槲皮素-3-葡萄糖苷 → 槲皮素苷元。
如何影响吸收:苷元的脂溶性远高于糖苷,更易通过被动扩散或转运体进入肠上皮细胞。没有这一步,后续吸收无从谈起。
②第二步:C环裂解(降解)
苷元在结肠深处被特定菌群“拆解”骨架,这是生物利用度差异的最大来源。
关键菌群主要是专性厌氧菌:
•真杆菌属(Eubacterium):尤其是 E. ramulus(细枝真杆菌),这是人类肠道中最主要的槲皮素降解菌之一。它能将槲皮素C环裂解,生成3,4-二羟基苯乙酸(DOPAC)。
•梭菌属(Clostridium):如 C. orbiscindens, C.perfringens(产气荚膜梭菌)。它们能执行类似的裂解反应,生成DOPAC或3-(3,4-二羟基苯基)丙酸等。
•黄酮降解菌(Flavonifractor plautii):专门负责黄酮类化合物的C环裂解。
具体作用:槲皮素苷元 → 查耳酮中间体 → 酚酸(如DOPAC)。
如何影响吸收:苷元虽然能被吸收,但极易被肝脏代谢(首过效应)。而DOPAC等酚酸分子量小、水溶性好,吸收效率极高,且能避开部分首过代谢,直接进入体循环发挥全身作用。
③第三步:次级修饰(再加工)
生成的初级酚酸会被其他菌群进一步修饰,改变其生物活性。
具体作用:
•脱羟基:DOPAC(3,4-二羟基)→ 3-羟基苯乙酸或4-羟基苯乙酸。
•甲基化:生成异香草酸等。
这些修饰改变了代谢物的极性和稳定性,影响了其在体内的半衰期和靶点亲和力。
✔ 菌群协作与代谢产物图谱
肠道菌群是一个生态系统,它们通过“交叉喂养”协作完成代谢。例如,Bacteroides thetaiotaomicron本身不代谢槲皮素,但它能降解淀粉为葡萄糖,为 E.ramulus提供能量,从而促进后者对槲皮素的降解。
槲皮素在肠道内的典型代谢路径与产物:
编辑
✔ 菌群差异如何导致生物利用度“天差地别”
“降解型”菌群 vs “保守型”菌群:若个体肠道内富含 E. ramulus 和 梭菌,槲皮素会被迅速降解为二羟苯乙酸(DOPAC),尿液中酚酸排泄量高,全身可利用的活性代谢物多。
若个体缺乏这些裂解菌,槲皮素可能仅被去糖基化,吸收量有限,且多以原形在肝脏被结合排出。
“菌群-底物”匹配度:摄入芦丁(芸香糖苷)等复杂糖苷,完全依赖菌群的α-鼠李糖苷酶和β-葡萄糖苷酶。缺乏相应酶的菌群(如某些人群),芦丁的生物利用度很低。
摄入洋葱(富含槲皮素-4′-葡萄糖苷),小肠可直接吸收一部分,对菌群依赖较小,故生物利用度相对稳定。
小结:菌群影响的“双刃剑”
正面(增效):菌群将“无效”糖苷转化为高生物利用度的活性酚酸,这是槲皮素发挥抗炎(激活CD8+ T细胞)、神经保护等作用的关键步骤。
负面(失活):过度降解会将槲皮素彻底分解为简单酚酸,丧失其原有的强抗氧化活性(因破坏了共轭结构)。
因此,肠道菌群不仅是槲皮素的“吸收助手”,更是其“活性转化工厂”。个体菌群结构的差异(如普雷沃菌与拟杆菌的比例)直接决定了你吃下去的洋葱或浆果,最终有多少能真正转化为进入血液的“有效槲皮素”。
▸ 槲皮素对肠道菌群的具体影响
槲皮素本质上表现为一种“类益生元调节因子”,其核心作用机制是:选择性促进有益菌生长、抑制致病菌繁殖,同时增强菌群代谢产物(如短链脂肪酸)的生成,从而改善肠屏障功能、降低炎症反应并影响全身代谢过程。
槲皮素对肠道菌群的调节作用主要体现在以下几个方面:
⑴ 促进有益菌的生长
•双歧杆菌(Bifidobacterium)↑:多项研究(包括综述和动物实验)一致发现槲皮素可显著增加双歧杆菌数量。这类菌能产生乙酸和乳酸,抑制致病菌生长,促进肠屏障功能,从而改善肠道稳态。
•乳杆菌(Lactobacillus)↑:作为多酚干预后常见的增加菌属,乳酸杆菌能降低肠道pH值,产生抗菌物质,调节免疫功能。
普拉梭菌(Faecalibacterium prausnitzii)↑:作为重要的抗炎菌和丁酸主要来源菌,普拉梭菌能抑制NF-κB炎症通路,维持上皮细胞完整性。
•罗斯氏菌(Roseburia)↑:这是一类与代谢健康密切相关的产丁酸菌,其数量增加有助于改善代谢指标。
•Akkermansia muciniphila ↑(部分研究):作为一种黏液降解菌,Akkermansia muciniphila能促进黏液层更新,与肥胖改善和糖代谢改善密切相关。
⑵ 抑制有害菌/条件致病菌
•变形菌门(Proteobacteria)↓:作为肠道菌群失衡的关键标志菌门,变形菌门包含多种致炎菌。研究显示在小鼠中,槲皮素干预可显著降低变形菌门数量。
•大肠杆菌(Escherichia coli)↓:作为典型的内毒素(LPS)来源菌,大肠杆菌数量减少与炎症减轻和肠屏障功能改善相关。
•肠杆菌科(Enterobacteriaceae)↓:这类菌与代谢紊乱密切相关,其数量减少有助于改善代谢指标。
•梭杆菌科(Fusobacteriaceae)(部分下降):与炎症反应和肿瘤发生相关,部分研究显示槲皮素可降低其数量。
⑶ 恢复菌群多样性
菌群多样性是肠道健康的重要指标。文献研究显示,抗生素破坏后肠道菌群多样性显著下降,而槲皮素干预可使α多样性显著恢复。这表明槲皮素的核心作用之一是“把失衡菌群拉回健康结构”。
⑷ 对菌群代谢产物的影响
短链脂肪酸(SCFAs)↑:槲皮素干预可显著增加短链脂肪酸的生成,尤其是丁酸盐↑(最关键)、丙酸盐↑、乙酸盐↑。
动物研究显示,槲皮素干预后粪便丁酸盐水平显著增加。丁酸盐作为肠上皮细胞的主要能量来源,具有多种重要生理功能:增加紧密连接蛋白表达、降低炎症反应、调节免疫Treg细胞等。这是“菌群→宿主”相互作用的关键桥梁。
内毒素(LPS)↓:槲皮素通过减少大肠杆菌和变形菌门等内毒素产生菌的数量,显著降低肠道内毒素(LPS)水平。其结果是:
•降低全身炎症反应
•改善胰岛素抵抗
代谢通路改变:代谢组学研究显示,在小鼠中,槲皮素干预可引起多条代谢通路的改变,这些变化与糖脂代谢改善密切相关。
⑸ 对肠道屏障功能的影响
槲皮素对肠道屏障功能的改善作用主要体现在:
•紧密连接蛋白 ↑:ZO-1、Occludin和Claudin等紧密连接蛋白表达增加;
•肠通透性 ↓:D-乳酸和二胺氧化酶等肠通透性指标显著下降;
•肠道形态改善:绒毛长度增加,黏膜厚度增加。
槲皮素调节肠道微生物组成及肠道屏障保护
编辑
doi.org/10.1002/fft2.50
结果:有效防止”肠漏”发生,减少毒素进入血液循环。
总的来说,槲皮素可以通过促进有益菌、抑制致病菌、增强短链脂肪酸生成并修复肠屏障,将肠道从“炎症型生态”转向“稳态型生态”,进而对代谢、免疫乃至全身健康产生系统性益处。
随着对槲皮素研究的不断深入,人们逐渐发现其与多种药物之间存在较为复杂且多层面的相互作用,这些相互作用可能在一定程度上影响相关药物的疗效发挥,甚至增加不良反应发生的风险。
本章节将围绕槲皮素与不同类别药物之间的相互作用,从其潜在机制入手,结合相关研究结果,对其可能产生的影响及其在临床应用中的意义进行较为全面的介绍。
▸ 槲皮素与药物相互作用的基本机制
槲皮素与药物的相互作用主要通过以下三个途径实现:
⑴ 影响药物代谢酶系统(CYP450酶系)
槲皮素可抑制肝脏和肠道中的细胞色素P450(CYP450)酶系统,尤其是CYP3A4和CYP2C19。这些酶负责许多药物的代谢清除,当它们的活性被抑制时,药物在体内的代谢减慢,导致血药浓度升高,可能增强药效或增加毒性风险。
编辑
⑵ 干扰药物转运蛋白功能
槲皮素可抑制多种药物转运蛋白,包括:
OATP(有机阴离子转运蛋白):如OATP1B1、OATP1B3,主要负责药物从血液进入肝细胞的摄取过程。
P-gp(P-糖蛋白):主要在肠道、肾脏和血脑屏障中表达,负责将药物从细胞内泵出。
BCRP(乳腺癌耐药蛋白):参与多种抗癌药物的外排过程。
MRP2(多药耐药相关蛋白2):参与药物及其代谢物的排泄。
这些转运蛋白被抑制后,会改变药物的吸收、分布和排泄过程,导致血药浓度异常变化。
⑶ 药效学协同或拮抗作用
槲皮素本身具有抗氧化、抗炎、降糖等生物活性,与具有相似或相反作用的药物联用时,可能产生协同或拮抗效应,增强或减弱药物疗效。
简单来说,槲皮素通过“抑制代谢+改变转运+协同药效”这三种方式,影响药物在体内的吸收、分布、代谢和排泄,从而改变药物的血药浓度(AUC)和最终疗效/毒性。
1
槲皮素与抗癌药物的相互作用
槲皮素与抗癌药物的相互作用具有“双刃剑”特性,既可能增强疗效,也可能增加毒性风险。
✔ 作用机制总结:
槲皮素通过以下途径影响抗癌药物效果:
•抑制P-gp和BCRP表达,逆转肿瘤细胞的多药耐药性。
•增加caspase-3活性和Bax/Bcl-2比值,促进肿瘤细胞凋亡。
•减少ROS相关损伤,发挥抗氧化保护作用。
•抑制NF-κB通路,增强抗炎和抗肿瘤效果。
槲皮素与抗肿瘤药物用于治疗癌症
编辑
doi.org/10.1007/s43450-022-00347-6
2
槲皮素与降糖药物的相互作用
槲皮素本身具有一定的降糖活性,与降糖药物联用时可能产生协同效应,增强降糖效果,但有时也会增加低血糖风险。
编辑
✔ 临床意义:糖尿病患者在服用降糖药物期间,若同时使用槲皮素补充剂,应密切监测血糖变化,警惕低血糖发生,必要时调整药物剂量。
3
槲皮素与抗生素的相互作用
槲皮素与抗生素的相互作用较为复杂,可能增强或减弱药效,或影响药物代谢。
编辑
特别提示:槲皮素还可通过改变肠道菌群组成影响口服抗生素的代谢和吸收,可能导致药效不稳定。
4
槲皮素与心血管药物的相互作用
槲皮素与多种心血管药物存在显著相互作用:
编辑
!极高风险组合:地高辛与槲皮素的相互作用已在动物实验中证实可导致猝死,临床应避免合用。
5
槲皮素与降脂药物(他汀类)的相互作用
他汀类药物是CYP3A4和OATP的底物,易受槲皮素影响。
编辑
✔ 临床建议:服用他汀类药物的患者,若同时使用槲皮素补充剂,应密切监测肌痛、乏力等症状,定期检查肌酸激酶(CK)水平,警惕肌病和横纹肌溶解症的发生。
6
槲皮素与精神药物的相互作用
编辑
7
槲皮素与凝血药物的相互作用
槲皮素具有抑制血小板聚集和抗凝血作用,与抗凝药物联用时可能增加出血风险。
编辑
!特别警告:华法林与槲皮素的相互作用具有高度风险,可能导致严重出血事件,临床上应避免将高剂量槲皮素与华法林联用。
▸ 槲皮素药物相互作用的特点与风险因素
⑴ 剂量依赖性
槲皮素和药物相互作用具有明显的剂量依赖性:
膳食摄入(低剂量):日常饮食中摄入的槲皮素(如每天食用洋葱、苹果等)剂量较低(通常为数毫克至数十毫克),一般不会产生显著的药物相互作用。
补充剂(高剂量):当槲皮素以补充剂形式高剂量摄入时(通常为500mg/天以上),药物相互作用风险显著增加,可能产生临床意义的影响。
⑵ 个体差异大
不同个体对槲皮素与药物相互作用的反应存在显著差异,主要影响因素包括:
肠道菌群组成:肠道菌群可代谢槲皮素,不同菌群结构可能导致槲皮素代谢产物和暴露量的差异。
基因多态性:CYP450酶系(如CYP3A4、CYP2C19)和转运蛋白的基因多态性可影响其活性,导致药物代谢和转运的个体差异。
基础疾病状态:肝肾功能不全可能影响槲皮素和药物的代谢排泄,增加相互作用风险。
⑶ “体外强,体内不一定强”
许多槲皮素的药物相互作用在体外实验中显示显著效果,但在人体研究中可能观察不到同等程度的影响。这是因为:
•槲皮素在体内会被快速代谢,生物利用度较低;
•体外实验中槲皮素浓度通常高于体内可达到的实际浓度;
•肠道首过效应和组织分布特性可能减弱其体内作用。
因此,不能单纯根据体外研究结果推断槲皮素在人体内的药物相互作用强度。
小编的话
槲皮素是一种具有多种生物活性的天然黄酮类化合物,通过抑制CYP450代谢酶、干扰转运蛋白功能和产生药效学协同/拮抗作用,可与多种药物发生相互作用。这些相互作用在高剂量补充剂使用时尤为显著,可能影响药物疗效或增加不良反应风险,尤其是与地高辛、华法林、降糖药和抗癌药等联用时需特别谨慎。
对于大多数健康人群,通过日常饮食适量摄入槲皮素是安全的,无需过度担忧。但对于需要长期服用药物的慢性病患者,特别是服用上述高风险药物的人群,应避免自行使用槲皮素补充剂,必要时在医生指导下使用,并进行密切监测,以确保用药安全有效。
槲皮素作为一种广泛存在于天然食物中的多酚类活性成分,其摄入方式与体内利用效率近年来逐渐受到关注。尽管槲皮素具有多种潜在健康益处,但其实际生物效应在很大程度上受到吸收效率、生物利用度及个体差异的限制。
基于此,有必要对槲皮素的合理摄入途径、补充剂使用时机以及提高其利用率的关键因素进行系统梳理,以更科学地指导其在营养与健康管理中的应用。
吃进去≠被身体用上
在讨论”怎么补”之前,我们必须面对一个重要的科学事实——槲皮素的口服生物利用度极低。
原因包括:
所以,补充槲皮素的核心逻辑从来不是”吃多少”,而是”吃对形式 + 吃得更容易被吸收 + 让肠道菌群帮你加工“。接下来的内容都围绕这个逻辑展开。
1
从天然食物获取:最安全、最推荐的基础方式
✔ 哪些食物富含槲皮素?
槲皮素广泛存在于植物性食物中,但含量差异巨大。以下数据来自数据库及文献汇总:
槲皮素的主要来源
编辑
doi: 10.3390/ph16071020.
编辑
几个值得记住的要点:
✔ 怎么吃才能留住更多槲皮素?
知道吃什么只是第一步,怎么吃同样关键——甚至更关键。
第一,少加工、少去皮: 槲皮素集中在植物表皮和外层组织中。苹果带皮吃、洋葱只去最外层干皮,是最简单的保量策略。煮沸会显著降低槲皮素含量,储存12天的洋葱会损失约33%。因此,优先选择生食,若需烹调,应以快炒或短时蒸煮为宜。
第二,搭配一点脂肪:槲皮素虽非典型脂溶性物质,但具有较强脂溶性,与膳食脂肪同服可使其生物利用度提高约2倍。实际应用中无需精确控制脂肪摄入,简单搭配如橄榄油拌洋葱、西兰花配坚果或苹果蘸花生酱即可。
第三,长期规律摄入远比一次猛吃重要: 口服槲皮素糖苷后,消除半衰期约为11–28小时,这意味着它不会在体内长期蓄积。一次性大量摄入后其水平会迅速回落,而每日少量、持续补充更有助于维持稳定血药浓度,从而发挥抗炎和抗氧化作用。
✔ 天然食物的隐性优势
为什么始终推荐以食物为基础?不只是因为”天然”这个标签,而是有实实在在的科学理由:
简而言之,日常保健和轻度抗炎需求,食物完全够用。
2
补充剂:什么时候才真正有意义?
✔ 谁需要考虑补充剂?
如果你的情况属于以下任何一种,单纯靠食物可能不够:
✔ 补充剂的最大痛点:吸收差
普通槲皮素苷元补充剂面临和食物一样的问题——甚至更严重,因为食物中的糖苷形式反而比苷元更容易吸收。
好在,科学的进步已经提供了一些解决方案:
①先进制剂
编辑
②改变化学形式:槲皮素寡糖苷比苷元吸收率高约 20 倍,比芦丁高 10 倍,比单糖苷高 2 倍。这实际上更接近天然食物中槲皮素的存在形式。
③简单搭配策略:
✔ 安全上限
推荐每日最大剂量为1200mg。1000 mg/天持续 12 周的临床试验未观察到显著副作用,但超过12周的长期安全性数据目前仍然缺乏。
高剂量(>1 g/天)可能引起头痛、胃肠不适、四肢刺痛感,长期大剂量还可能增加肾结石风险(与草酸盐代谢物有关)。此外,槲皮素可抑制甲状腺过氧化物酶和 5′-脱碘酶 I 型,甲状腺功能异常者需格外谨慎。
3
被严重低估的关键变量:肠道菌群
未被小肠吸收的槲皮素进入结肠后,需要特定肠道细菌将其”拆解”为更小的活性分子。目前已鉴定出多个关键菌种:
这些细菌产生的代谢产物——二羟苯乙酸(DOPAC)、原儿茶酸、3-(3,4-二羟基苯基)丙酸等——是槲皮素在体内发挥许多生物学效应的重要”功臣”。
✔ 菌群代谢物增强抗肿瘤免疫
2025 年发表在 Cell Metabolism 上的研究揭示了一个令人振奋的机制:槲皮素被肠道菌群代谢产生的 二羟苯乙酸(DOPAC),可通过激活 KEAP1-NRF2 通路增强 CD8⁺ T 细胞的抗肿瘤免疫功能,并与免疫检查点阻断疗法产生协同效应。
这意味着,槲皮素的抗癌潜力可能高度依赖于你的肠道菌群能否将它转化为 DOPAC。
✔ 个体差异较大
由于每个人的肠道菌群组成不同,对槲皮素的代谢能力存在巨大差异。抗生素破坏菌群后,槲皮素的生物活性显著降低。这解释了一个常见困惑:为什么有人吃了槲皮素觉得效果明显,有人却毫无感觉——不是槲皮素没用,而是你的菌群”加工厂”产能不同。
✔ 怎么优化?养好你的菌群
好消息是,槲皮素与肠道菌群的关系是双向的:槲皮素也能反过来调节菌群组成——降低厚壁菌门/拟杆菌门比值,增加 Akkermansia、双歧杆菌和乳杆菌等有益菌。但要启动这个正向循环,你需要同时做好两件事:
一句话总结:养菌群就是养槲皮素的效果。
✔ 黄金搭配:让槲皮素发挥更大效用
槲皮素 + 维生素C:这是最经典、证据最充分的组合。维生素C不仅能与槲皮素产生协同抗氧化效应,还能稳定槲皮素分子、减缓其氧化降解。
槲皮素 + 多酚:天然食物中,槲皮素从不孤军奋战。白藜芦醇、儿茶素(绿茶)、花青素(浆果)等多酚类与槲皮素存在协同抗炎效应。与其追求单一成分的高剂量,不如通过多样化的植物性饮食构建一个”多酚朋友圈”。
槲皮素 + 膳食脂肪:搭配脂肪可提升约2倍生物利用度。不需要大量油脂,一小勺橄榄油或几颗坚果即可。
一句话总结
槲皮素不是”吃得越多越好”的简单营养素,而是一个依赖吸收效率和肠道菌群加工的功能性成分。
最优策略是:以天然食物为根基,用科学搭配提升吸收,在特定需求下谨慎选择高生物利用度补充剂——同时,永远别忘了照顾好你肠道里那些默默帮你”加工”槲皮素的小小细菌。
来自蔬菜水果中的槲皮素作为一种天然多酚类活性成分,在抗氧化、抗炎、心血管保护、神经保护、抗肿瘤及代谢调节等领域展现出了广泛的潜在益处。
肠道菌群对槲皮素而言是一个精密的活性转化工厂。与此同时,槲皮素也能反过来调节菌群组成,促进有益菌增殖、抑制致病菌、增加短链脂肪酸生成并修复肠屏障,形成一个双向互促的循环。
个体菌群特征可以预判个体对槲皮素的代谢能力,例如关键降解菌(如E. ramulus、Flavonifractor plautii等)的丰度,从而实现”因人制宜”的个性化推荐。
未来槲皮素菌群代谢产物的药理活性值得更深入的研究,尤其是在抗肿瘤免疫、神经保护等方面的具体机制和临床转化潜力。此外,如何通过益生元、益生菌或菌群移植等手段定向优化肠道菌群,以提升槲皮素的生物利用度,值得持续关注和探索。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Mirza MA, Mahmood S, Hilles AR, Ali A, Khan MZ, Zaidi SAA, Iqbal Z, Ge Y. Quercetin as a Therapeutic Product: Evaluation of Its Pharmacological Action and Clinical Applications-A Review. Pharmaceuticals (Basel). 2023 Nov 20;16(11):1631.
Yang D, Wang T, Long M, Li P. Quercetin: Its Main Pharmacological Activity and Potential Application in Clinical Medicine. Oxid Med Cell Longev. 2020 Dec 30;2020:8825387.
Carrillo-Martinez EJ, Flores-Hernández FY, Salazar-Montes AM, Nario-Chaidez HF, Hernández-Ortega LD. Quercetin, a Flavonoid with Great Pharmacological Capacity. Molecules. 2024 Feb 25;29(5):1000.
Aghababaei F, Hadidi M. Recent Advances in Potential Health Benefits of Quercetin. Pharmaceuticals (Basel). 2023 Jul 18;16(7):1020.
Zou H, Ye H, Kamaraj R, Zhang T, Zhang J, Pavek P. A review on pharmacological activities and synergistic effect of quercetin with small molecule agents. Phytomedicine. 2021 Nov;92:153736.
Batiha GE, Beshbishy AM, Ikram M, Mulla ZS, El-Hack MEA, Taha AE, Algammal AM, Elewa YHA. The Pharmacological Activity, Biochemical Properties, and Pharmacokinetics of the Major Natural Polyphenolic Flavonoid: Quercetin. Foods. 2020 Mar 23;9(3):374.
Chiang MC, Tsai TY, Wang CJ. The Potential Benefits of Quercetin for Brain Health: A Review of Anti-Inflammatory and Neuroprotective Mechanisms. Int J Mol Sci. 2023 Mar 28;24(7):6328.
doi.org/10.1002/fft2.50
doi.org/10.1007/s43450-022-00347-6
Yuan M, Sun T, Zhang Y, Guo C, Wang F, Yao Z, Yu L. Quercetin Alleviates Insulin Resistance and Repairs Intestinal Barrier in db/db Mice by Modulating Gut Microbiota. Nutrients. 2024 Jun 14;16(12):1870.
Deepika, Maurya PK. Health Benefits of Quercetin in Age-Related Diseases. Molecules. 2022 Apr 13;27(8):2498.
Nie J, Zhang L, Zhao G, Du X. Quercetin reduces atherosclerotic lesions by altering the gut microbiota and reducing atherogenic lipid metabolites. J Appl Microbiol. 2019 Dec;127(6):1824-1834.
Ulusoy HG, Sanlier N. A minireview of quercetin: from its metabolism to possible mechanisms of its biological activities. Crit Rev Food Sci Nutr. 2020;60(19):3290-3303.
Almeida AF, Borge GIA, Piskula M, Tudose A, Tudoreanu L, Valentová K, Williamson G, Santos CN. Bioavailability of Quercetin in Humans with a Focus on Interindividual Variation. Compr Rev Food Sci Food Saf. 2018 May;17(3):714-731.
Shi T, Bian X, Yao Z, Wang Y, Gao W, Guo C. Quercetin improves gut dysbiosis in antibiotic-treated mice. Food Funct. 2020 Sep 23;11(9):8003-8013.
Chen X, Pan S, Li F, Xu X, Xing H. Plant-Derived Bioactive Compounds and Potential Health Benefits: Involvement of the Gut Microbiota and Its Metabolic Activity. Biomolecules. 2022 Dec 13;12(12):1871.
Oh JH, Lee JH, Lee YJ. Evaluation of the Mrp2-mediated flavonoid-drug interaction potential of quercetin in rats and in vitro models. Asian J Pharm Sci. 2019 Nov;14(6):621-630.
Mohos V, Fliszár-Nyúl E, Ungvári O, Kuffa K, Needs PW, Kroon PA, Telbisz Á, Özvegy-Laczka C, Poór M. Inhibitory Effects of Quercetin and Its Main Methyl, Sulfate, and Glucuronic Acid Conjugates on Cytochrome P450 Enzymes, and on OATP, BCRP and MRP2 Transporters. Nutrients. 2020 Jul 31;12(8):2306.
Tamura M, Hoshi C, Kobori M, Takahashi S, Tomita J, Nishimura M, Nishihira J. Quercetin metabolism by fecal microbiota from healthy elderly human subjects. PLoS One. 2017 Nov 27;12(11):e0188271.
谷禾健康
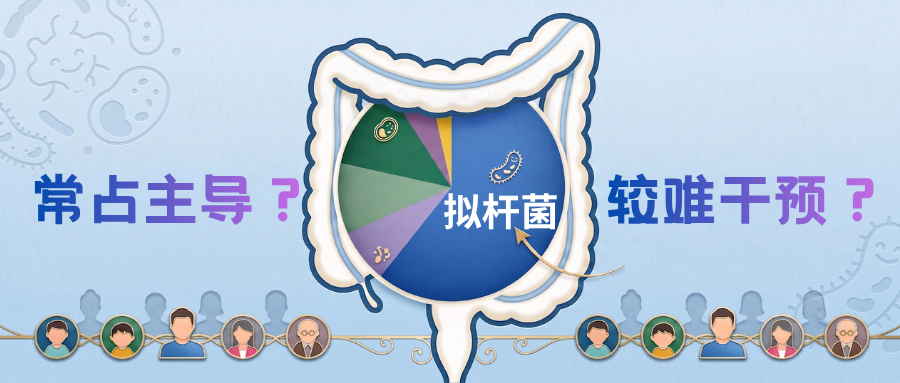
在谷禾大量人群肠道菌群测序数据中,一个反复出现的现象逐渐引起关注:拟杆菌往往占据主导地位。更耐人寻味的是,即便在饮食剧烈改变、疾病发生,甚至经过益生菌等干预后,肠道生态发生明显波动,这一“核心类群”却依然保持稳定,难以被真正取代。这不禁让人思考:拟杆菌为何具有如此强的“稳态优势”,它在肠道生态中究竟扮演着怎样的角色?
肠道微生态是一个长期维持稳态的复杂生态系统,而拟杆菌作为其中的关键类群,具有较强的环境适应能力、代谢灵活性和长期定植能力,总是在群落中占据重要地位。
拟杆菌之所以常常占主导,不只是因为它多,还因为它同时掌握了“食物从哪来、怎么分给其他肠道菌群、还要怎么和身体打交道”这三件最关键的事。
1
极强的“吃饭能力”—碳源入口
拟杆菌最突出的能力是分解复杂多糖,如膳食纤维、植物细胞壁和黏液等。
• 具备丰富的多糖利用位点,可代谢多种碳水化合物
拟杆菌拥有大量多糖利用位点(PULs),每一个 PUL相当于一套“识别+运输+降解”复杂多糖的完整系统。可以针对不同来源碳水(植物、藻类、宿主黏液)进行定制化利用。
研究发现,拟杆菌是肠道中最重要的复杂碳水降解者之一,参与宿主能量获取,并影响代谢效率。
通俗来说,其他菌较为挑食,而拟杆菌几乎能利用各种复杂底物,兼具分解与供能功能,因此在典型的现代高碳水、结构复杂的饮食条件下更具优势。
2
是“代谢网络的重要起点”
拟杆菌在维持肠道微生态稳态中具有”结构性作用”,不仅自身代谢,还支撑其他菌生长。
• 拟杆菌能够支持肠道内其他菌生长
拟杆菌是”交叉喂养(cross-feeding)网络的起点”。它分解复杂多糖后释放出寡糖、单糖和代谢中间产物(如乙酸、丙酸),这些物质可以被其他菌(如厚壁菌门)进一步利用。
因此,拟杆菌不仅是一个物种,更像是一种”生态功能层”,通过“喂养”整个菌群的一大部分成员来维持其核心地位。
3
能利用两种资源:外源饮食+内源宿主
拟杆菌具有利用宿主来源底物的能力,是其长期定植的重要原因。大多数菌只能依赖外源饮食,而拟杆菌具有独特的“双资源通道”:
• 外源资源:膳食纤维、多糖等饮食成分。
• 内源资源:肠道黏液糖蛋白等宿主自身成分。
通俗地说:它不是依赖你吃的食物活,而是”部分依赖你身体本身”活。这意味着:你吃得好→它活得好;你不吃(节食/低碳)→它还能活。
4
深度参与”宿主调控系统”
拟杆菌不仅是肠道中的”乘客”,更像”调控者”,深度参与宿主多个生理系统的调节:
• 免疫系统训练:调节Treg细胞,影响炎症水平。
• 肠道屏障维护:促进黏液层动态平衡。
• 代谢信号调控:产生SCFAs(尤其丙酸),影响肝脏糖脂代谢。
拟杆菌被认为在免疫调节和代谢稳态中具有核心作用。
拟杆菌是成人肠道菌群的核心类群之一,经过长期筛选而稳定存在。其兼具对宿主有益(代谢与免疫)、可长期定植以及耐受环境波动(厌氧环境适应强、能耐受胆汁、能黏附肠黏膜)等特征,因此可视为被宿主选择保留的菌群。
5
对”现代饮食结构”具有额外优势
• 现代饮食结构更利于拟杆菌而不是普雷沃氏菌
拟杆菌在很大程度上可以被视为“现代饮食的受益者”。在以高蛋白、高脂以及精加工碳水为特征的现代饮食结构中,食物残渣不仅来源多样,而且分子结构复杂,这类底物更符合拟杆菌的代谢特点和生存需求,使其更容易占据优势地位。
相较之下,这种饮食环境则不利于一些代谢底物较为单一、依赖特定碳源的专一型菌群(如Prevotella)的生长与维持。
并且,拟杆菌与普雷沃氏菌之间还存在相互拮抗的关系,二者属于彼此对立、相互制约的菌属。
小编的话
拟杆菌之所以能够成为主导菌群,是因为它在肠道生态中同时占据并调控了多个关键层面。首先在上游,它掌握了复杂碳水进入代谢体系的“入口”;在中游,它参与并影响菌群整体的能量流动与分配;在下游,它进一步作用于宿主的代谢过程和免疫调控。
除此之外,拟杆菌还能够利用宿主来源的资源,并具备良好的环境适应能力,从而在波动条件下保持稳定。这些多层功能的协同作用,使其成为肠道菌群的重要主导类型。
在人体肠道微生态中,拟杆菌虽被视为关键类群,但其在不同人群中的丰度却呈现出显著差异,甚至可达“群体特征”的程度,这种差异可以从下面几个层面理解。
人类肠道微生物在门级和属级的全球分布与丰度
doi: 10.1038/nmicrobiol.2017.26.
1
饮食差异(最重要因素)
饮食是微生物组多样性的主要驱动力。最近的遗传学研究强调了宿主基因型在确定肠道微生物组中特定类群的相对丰度方面的重要性,但很少有拟杆菌受到宿主遗传学的影响(即是可遗传的)。这意味着,对于该门的大多数成员来说,环境因素(包括饮食)决定了它们在宿主中的相对丰度。
编辑
• 西式饮食人群拟杆菌比例更高
饮食研究报告了粪便中拟杆菌的相对丰度与富含动物性食物(高脂肪、高蛋白)和低纤维饮食之间的关联。粪便高拟草菌丰度与富含蛋白质和动物脂肪的饮食呈正相关,与纤维摄入负相关。
•高蛋白/高脂饮食(西方饮食)→拟杆菌比例 ↑
•高纤维/高多样植物饮食→Prevotella比例 ↑
不过,从长期来看,较高纤维摄入也可能与拟杆菌的稳定优势相关,提示其对不同饮食结构具有一定适应性。因此,最明确的结论是:短期内,高脂肪、高蛋白、低纤维的动物性饮食最直接促进拟杆菌升高,而长期影响则更为复杂。
• 营养过剩可能会减少拟杆菌
拟杆菌被发现对过度营养较为敏感。研究中发现,将肥胖与瘦个体分别置于体重维持或过量饮食(2400与3400千卡/天)下,瘦者在过量喂食后粪便中拟杆菌减少约20%,同时能量吸收增加约150千卡;类似结果也见于芬兰单卵双胞胎,过量能量摄入与拟杆菌减少相关。
相反,胃旁路手术后拟杆菌增加,可能与能量负荷降低而非体重变化有关。这些结果表明,营养状态可调节拟杆菌丰度并影响能量获取效率,这也与早期在肥胖模型中观察到的低拟杆菌水平以及节食时其升高的现象一致。
注:有研究发现健康成年人中,较高的饮食质量评分与拟杆菌丰度呈负相关。
• 营养不良也可能影响拟杆菌丰度
研究显示营养不良对拟杆菌丰度的影响并不一致。在孟加拉儿童中,营养不良通常伴随拟杆菌减少,但不同成员变化不同,例如Prevotella在健康儿童中更丰富,而部分拟杆菌在营养不良者中反而增加。
另一研究也发现,营养不良儿童中B.fragilis、B.galacturonicus和P. copri等菌减少。拟杆菌的缺乏可能通过降低多糖发酵和短链脂肪酸生成能力而加重营养不良。
动物研究提供了更可控的证据:小鼠禁食1–3天时,拟杆菌门比例显著升高。但不同分类单元对进食模式反应不一,例如限制进食时间的大鼠中,Prevotella增加而拟杆菌门总体下降,反映出该类群内部存在复杂而差异化的动态变化。
• 拟杆菌丰度还可能随昼夜和季节变化
研究表明肠道微生物组会随饮食的昼夜节律呈现相应波动。小鼠禁食期间拟杆菌在白天达到峰值,而夜间进食时下降;但不同研究结果并不一致。在缺失宿主生物钟的小鼠中观察到,无论进食安排在昼或夜,菌群丰度均在12小时内达到峰值。
在人类中,副杆菌属的最低丰度通常出现在午夜。这些昼夜变化与进食模式之间的关系仍有待进一步阐明。
在饮食结构基本稳定、但夏季新鲜农产品增加的群体中,拟杆菌比例由冬季的11%升至夏季的30%,可能与更复杂的碳水化合物摄入有关。
门级分类单元的丰度因季节而异
编辑
doi: 10.1371/journal.pone.0090731.
• 吸烟和饮酒会增加拟杆菌丰度
随着酒精摄入增加,拟杆菌的相对比例往往上升;与此同时,这种能量来源却与厚壁菌门的丰度呈负相关,即其水平可能随之下降。
吸烟人群的肠道微生物组成也表现出类似的变化趋势:拟杆菌的相对丰度增加,而厚壁菌门以及变形杆菌的水平则相应减少。
2
地理与气候因素
• 低纬度地区拟杆菌丰度较高
研究表明,地理纬度与拟杆菌的相对比例之间存在一定相关性。一项涵盖1020名健康个体、跨越23个不同人群的研究显示,拟杆菌的相对丰度随纬度升高而显著下降,与之相对的厚壁菌门则呈上升趋势,这种分布格局甚至被认为与能量获取策略的生态适应有关。
同时,各地人群的能量需求也可能不同,如高纬度地区更依赖脂肪供能,而低纬度地区则更多依赖碳水化合物,这些因素共同影响了拟杆菌的丰度分布。
与此同时,多组学研究表明,肠道菌群虽在个体间高度独特,但在家庭或生活方式相似的人群中具有一定相似性,并在不同地理与饮食背景下显著分化。
3
个体早期定植(”起跑线不同”)
肠道菌群有很强的”路径依赖”,早期生活事件会决定最初的”菌群底盘“:
• 出生方式(顺产vs剖腹产):顺产婴儿在通过产道时会接触母体阴道和肠道菌群,更容易早期定植拟杆菌。
• 婴儿喂养(母乳vs配方奶):母乳中的低聚糖等成分有助于促进特定肠道菌群的建立,包括拟杆菌。
• 抗生素暴露:抗生素暴露通常会显著扰动拟杆菌的丰度,但具体影响取决于抗生素类型、剂量和使用时间。
而拟杆菌一旦在早期建立优势,很容易长期维持这一优势地位。
4
宿主基因与免疫系统
个体间的基因差异导致:
• 黏液成分不同;
• 免疫识别差异;
• 胆汁酸代谢差异。
这些因素都会影响”哪类菌更容易被允许长期存在”,从而导致拟杆菌比例的个体差异。
5
生活方式(被严重低估的因素)
包括压力、睡眠、运动和药物使用(特别是抗生素、质子泵抑制剂)等生活方式因素都会影响拟杆菌比例。研究指出,很多菌群研究结果的差异来自”未控制生活方式变量“。
• 压力
慢性心理或生理压力可通过“肠-脑轴”调节肠道菌群:一方面,皮质醇等压力激素会改变肠道通透性与免疫反应并增加炎症;另一方面,还会影响肠道蠕动与分泌功能。这些变化不利于厌氧菌群稳定,可能导致拟杆菌丰度下降或波动加剧,并促进部分机会致病菌扩张。
• 睡眠
睡眠节律紊乱会干扰宿主的昼夜节律,进而影响肠道微生物的周期性变化。拟杆菌具有一定的昼夜波动特征,睡眠不足或昼夜颠倒可打乱其增殖节律,导致丰度下降或节律减弱。同时,睡眠不足还与炎症升高和代谢紊乱相关,从而间接影响其生态位。
• 运动
适度运动可提升肠道菌群多样性并改善代谢环境(如促进短链脂肪酸代谢),使拟杆菌丰度更稳定甚至增加;而过度训练可能引发应激反应和肠道通透性升高,反而不利于拟杆菌,呈现双向效应。
• 药物使用
抗生素是影响最直接且显著的因素之一。广谱抗生素会降低肠道菌群多样性,并明显抑制甚至短期清除拟杆菌;其恢复速度和程度因人而异,可能导致长期丰度变化或群落重塑。
质子泵抑制剂(PPI)通过抑制胃酸、提高胃内pH,削弱上游屏障,使更多口腔或外源细菌进入肠道,从而改变微生态结构,通常降低拟杆菌的相对优势,并增加其他菌群比例。
6
体质指数(BMI)
已经有不少研究分析了体质指数(BMI)与肠道微生物组成之间的关系,重点分析厚壁菌门(Firmicutes)与拟杆菌门(Bacteroidetes)的比例(F/B比值)。
• 肥胖人群中的拟杆菌门可能比例减少
不同BMI类别中主要微生物的相对丰度
编辑
doi: 10.1186/s12866-017-1027-1.
结果显示,随着BMI升高,厚壁菌门丰度增加、拟杆菌门减少,导致F/B比值显著升高,并且该比值与肥胖呈显著正相关,即使在控制年龄、性别、吸烟和体力活动等因素后仍成立。但不同人群中结果存在差异,可能与饮食和环境因素有关。
7
肠道疾病(溃疡性结肠炎)
编辑
肠道疾病,尤其是溃疡性结肠炎,与拟杆菌的“降低和多样性丧失”密切相关。这种变化不仅反映疾病状态,还可能参与疾病发生发展。
• 溃疡性结肠炎患者中拟杆菌丰度降低
在溃疡性结肠炎(UC)患者中,拟杆菌整体多样性和丰度明显降低。研究显示,与健康对照相比,UC患者中至少6种拟杆菌显著减少,同时有12种拟杆菌与疾病活动度指标(如炎症水平、临床评分)显著相关。这说明拟杆菌的减少不仅是“伴随现象”,还与疾病严重程度直接相关。
12种关键拟杆菌与UC相关基因表达热图
编辑
doi: 10.3390/jcm10081749.
从现有研究与人群数据来看,在成人肠道中较为常见的主导拟杆菌种主要包括:多形拟杆菌(Bacteroides thetaiotaomicron)、卵形拟杆菌(Bacteroides ovatus)、单形拟杆菌(Bacteroides uniformis)、脆弱拟杆菌(Bacteroides fragilis)以及粪便拟杆菌(Bacteroides stercoris)。
这些菌种在不同个体中可以形成“优势替代”关系,即在总体拟杆菌占比相似的情况下,具体主导菌种却截然不同。它们在功能上既有重叠又各具特色。
1
多形拟杆菌(B. thetaiotaomicron)
首先,多形拟杆菌(B. thetaiotaomicron)是多糖利用能力突出的代表,以强大的多糖降解能力和生态适应性著称。
其具有以下核心特点:
•强大的多糖利用能力:基因组编码超过226种糖苷水解酶和15种多糖裂解酶,可降解超过20种不同的植物多糖,包括木聚糖、果胶、葡甘露聚糖等。其163个SusC/SusD同源物(外膜多糖结合蛋白)构成了复杂的多糖识别系统。
•宿主多糖利用:当膳食多糖缺乏时,多形拟杆菌可转向利用宿主黏液聚糖,通过上调己糖胺酶、α-岩藻糖苷酶和唾液酸酶等基因,降解肠道黏液层中的糖蛋白。这种能力使其在营养匮乏时仍能维持生存。
•肠道发育调控:多形拟杆菌可刺激肠道血管生成(通过血管生成素-3)、促进上皮细胞成熟(上调SGLT-1等营养吸收相关基因),并增强肠道屏障功能(诱导紧密连接蛋白表达)。
•免疫调节:通过PPARγ依赖性通路抑制促炎基因(如NF-κB)的转录,减少肠道炎症反应。其外膜囊泡可递送免疫调节分子,促进调节性T细胞(Treg)分化。
注:但在炎症环境中,其代谢产物也可能被机会致病菌利用,体现出典型的“双刃剑”特征。
2
卵形拟杆菌(B. ovatus)
其次,卵形拟杆菌(B. ovatus)同样具备强大的多糖降解能力,特点在于广谱底物利用,并具有潜在的神经递质调节作用。
其具有以下核心特点:
•多糖代谢专家:可降解超过30种植物多糖,包括果胶、菊粉、阿拉伯木聚糖等,对多糖代谢具有优先级,优先利用均聚半乳糖醛酸(果胶主链),其次是β-葡聚糖。
•神经递质调节:卵形拟杆菌可以消耗色氨酸和谷氨酸,合成γ-氨基丁酸(GABA)和谷氨酰胺。动物实验显示,卵形拟杆菌定植可增加肠道GABA浓度,可能通过肠-脑轴影响情绪和认知功能。
•免疫激活:是最能诱导肠道IgA产生的物种之一,通过IL-10和TGF-β信号促进Treg细胞分化,增强肠上皮屏障功能。其产生的吲哚-3-乙酸可激活树突状细胞的芳香烃受体(AhR),促进IL-22分泌。
B.ovatus调节免疫和肠道炎症
编辑
doi: 10.1016/j.ajpath.2021.01.009.
•代谢改善作用:改善胰岛素抵抗,降低血糖和血脂水平;通过调节胆汁酸代谢(增加猪去氧胆酸)减轻肾纤维化;在动脉粥样硬化模型中,通过抑制M1巨噬细胞极化减少炎症。
3
单形拟杆菌(B. uniformis)
单形拟杆菌(B. uniformis)则更多被认为是“代谢调节型拟杆菌”。
核心特点:
•代谢调节作用:与肥胖呈负相关,可降低血清胆固醇和甘油三酯水平,改善肝脂肪变性。研究显示,单形拟杆菌丰度与内脏脂肪面积(VFA)呈负相关,与胰岛素敏感性正相关。
•运动耐力提升:日本研究发现,长跑运动员肠道中单形拟杆菌丰度与3000米比赛成绩正相关。补充α-环糊精可增加单形拟杆菌丰度,提高耐力运动能力,其机制可能与促进肝脏糖异生有关。
•神经认知影响:儿童肠道中单形拟杆菌丰度与智商(FSIQ)评分正相关,尤其与语言能力相关。在长期封闭环境中,单形拟杆菌被鉴定为潜在的“精神抗生素”,通过产生短链脂肪酸和调节氨基酸代谢改善情绪。
•抗炎活性:可减轻DSS诱导的结肠炎,通过调节NF-κB和MAPK信号通路,减少促炎因子(TNF-α、IL-6)表达,增加抗炎因子IL-10水平。
4
脆弱拟杆菌(B. fragilis)
脆弱拟杆菌(B. fragilis)是功能高度分化的典型菌种,具有明显“双面性”:产肠毒素菌株(ETBF)与非产毒菌株(NTBF)作用迥异,既有通过多糖A发挥免疫调节的有益菌株,也有产生BFT毒素、与炎症性肠病及结直肠癌相关的致病菌株。
编辑
Sun F,et al.Food Res Int.2019
•非产肠毒素型脆弱拟杆菌对人体有益
因此,其“主导”并不简单等同于健康或异常,而更依赖于具体菌株层面的差异。共生不产肠毒素脆弱拟杆菌(NTBF)菌株已被证明属于典型条件性共生有益菌,对人体具有以下有益作用:
抗炎、改善结肠炎:脆弱拟杆菌(B. fragilis,NCTC 9343)产生的多糖A(PSA)具有显著抗炎作用,可通过诱导IL-10产生、扩增CD4+CD45Blow T细胞并抑制IL-17来调节免疫反应,从而预防并治疗结肠炎。
免疫调节:弱拟杆菌产生的两性离子PSA已被确定为一种免疫调节分子,在免疫系统成熟中发挥作用。T 辅助细胞1(TH1)和TH2细胞是效应CD4+ T细胞群的亚型。在之前的一项研究中,脆弱拟杆菌NCTC 9343或多糖A(PSA)都可以纠正无菌小鼠中的TH1/TH2细胞失衡并增强调节性T细胞(Treg)功能。
编辑
Sun F,et al.Food Res Int.2019
改善中枢神经系统疾病:脆弱拟杆菌对宿主具有间接影响,这归因于其独特的免疫调节功能。脆弱拟杆菌分泌的多糖A(PSA)是中枢神经系统脱髓鞘疾病的有效调节剂和抑制剂。
抑制气道炎症:研究表明,脆弱拟杆菌PSA可以通过诱导 CD4+ T 细胞的扩增和IL-10的产生来预防气道炎症和实验性哮喘。
促进抗癌:B.fragilis NCTC 9343 还有效促进抗癌免疫监视。口服脆弱拟杆菌或多糖可以逆转 CTLA-4 阻断抗癌疗法的无反应性。然而,许多患者不能很好地耐受多种副作用,特别是促炎作用。
•产肠毒素型脆弱拟杆菌则与多种人体疾病相关
产肠毒素脆弱拟杆菌(ETBF)菌株与多种涉及肠道和肠外感染的病症有关,包括炎症性肠病、菌血症、全身炎症和神经系统疾病。
编辑
Sun F,et al.Food Res Int.2019
我们将产肠毒素脆弱拟杆菌(ETBF)的主要危害概括为以下几个核心方面:
诱发结肠炎:
-BFT毒素裂解E-钙粘蛋白,破坏肠上皮屏障;
–激活Wnt、NF-κB、STAT3等炎症与增殖通路;
-诱导Th17免疫反应和IL-8等趋化因子释放,加重炎症;
-可导致持续性甚至致命性结肠炎(在易感宿主中)。
促进结直肠癌发生:
–增强肠上皮通透性并促进异常细胞增殖(如c-Myc上调);
-与慢性炎症协同推动肿瘤发生发展;
-与结直肠癌发生率呈显著相关
-可与pks⁺大肠杆菌协同,增加DNA损伤并加速癌变。
破坏肠道稳态:
-引发炎症级联反应,重塑肠道上皮至“疾病状态”;
-干扰正常菌群结构,导致生态失衡;
-在宿主易感条件下由共生转为致病。
诱导全身炎症及神经系统影响:
-产肠毒素脆弱拟杆菌脂多糖进入血液,引发系统性炎症;
-可能穿过血脑屏障,激活小胶质细胞炎症反应;
-与阿尔茨海默病等神经退行性疾病相关。
增强疾病易感性与进展风险:
-在FAP等高风险人群中显著富集;
–宿主易感性(免疫状态、菌群结构)决定其致病程度。
影响干预与治疗效果:
-具有较强生态位竞争能力,抑制有益菌(如NTBF)定植;
–降低益生菌干预效果,增加临床治疗复杂性。
5
粪便拟杆菌(B. stercoris)
粪便拟杆菌是人群检出率最高的拟杆菌种之一(超过97%),但与其他菌种不同,其在多种疾病状态中呈现出“富集趋势”,例如非酒精性脂肪性肝病、糖尿病肾病及克罗恩病等。
核心特点:
•疾病生物标志物:在非酒精性脂肪肝(NAFLD)患者中丰度显著升高,与肝内甘油三酯、谷丙转氨酶(ALT)水平正相关。研究显示,抗性淀粉干预可降低粪便拟杆菌丰度,改善肝功能指标。
编辑
doi: 10.1016/j.cmet.2023.08.002.
•肝细胞癌关联:早期肝细胞癌患者肠道中粪便拟杆菌丰度升高,晚期则显著降低,可能作为评估肝癌进展的无创生物标志物。
•潜在有益菌株:特定菌株(如B. stercoris KGMB02265)具有抗肥胖作用,可减少高脂饮食小鼠的脂肪沉积,改善葡萄糖耐量和血脂水平。
•抗病毒潜力:在低SARS-CoV-2传染性人群中丰度较高,可能通过产生短链脂肪酸增强免疫力,抑制病毒复制。
!
主要拟杆菌种的功能差异比较:
编辑
从整体来看,这些拟杆菌种之间的核心差异可以归纳为几个关键维度:
①代谢能力差异
拟杆菌种间最显著的差异体现在多糖利用谱上:
②代谢产物不同
不同拟杆菌产生的短链脂肪酸比例不同(如乙酸、丙酸为主),并且在胆汁酸代谢、氨基酸代谢等方面存在差异,这会进一步影响宿主代谢状态。
③免疫调节机制差异
不同拟杆菌种通过独特的机制调节宿主免疫:
④疾病关联差异
拟杆菌种与疾病的关联具有种特异性:
⑤环境适应性
主要体现在其应对外界干扰和维持自身稳定的能力上。这包括对抗生素作用的耐受程度、在炎症环境中持续生存与竞争的能力,以及与其他菌群之间的互作方式,如通过交叉喂养形成协同或竞争关系,从而共同影响其生态位的稳定性与扩张能力。
小编的话
因此,可以将不同人群中的拟杆菌主导模式理解为一种“功能等价但路径不同”的生态策略:它们都维持了肠道系统的基本功能(如多糖分解与能量供给),但具体由哪一个菌种承担这一角色,则取决于个体的长期饮食结构、代谢背景、免疫状态以及微生态历史。
这种差异也解释了一个重要现象:为什么在人群之间,即使都表现为“拟杆菌型肠型”,其健康状态却可能完全不同。关键不在于“有没有拟杆菌”,而在于“是哪一种拟杆菌在主导,以及它在执行什么功能”。
综上,不同人体中主导的拟杆菌种差异,本质上是肠道生态系统在长期演化与环境适应下形成的“个体化稳态”。理解这些差异,不仅有助于解释肠道菌群的稳定性与个体差异,也为精准营养与个体化微生态干预提供了重要基础。
肠道菌群是一个具有“稳态+恢复力”的复杂生态系统,而拟杆菌恰好位于这个系统的关键结构层。大多数干预只是”扰动”,而不是”重构”这个系统。
1
占据”重要生态位”
拟杆菌占据的不是普通位置,而是控制整个系统的“重要生态位”:
• 复杂多糖的初级降解(PUL系统);
• 黏液层的持续利用(宿主来源碳源);
• 与其他菌的交叉喂养起点。
拟杆菌对群落结构的这些”决定性作用”,使补充益生菌更像是在肠道生态中“引入新成员”,而拟杆菌则更接近于维持底层资源供给和代谢网络的“基础系统”(如复杂碳水的分解与利用)。外源菌株可以短期定植或产生作用,但通常难以替代拟杆菌在营养转化和生态稳定中的核心功能,因此其长期影响往往有限。
2
双重供能系统:不会被”断粮”
拟杆菌拥有两条能量获取途径,使其对饮食变化的“依赖度更低”:
外源供能:膳食纤维、多糖等饮食成分。
内源供能:肠道黏液等宿主自身成分。
这意味着,即使短期改变饮食或限制热量摄入,肠道中其他菌群可能出现较大波动,而拟杆菌通常仅发生相对丰度的调整,很少被完全替代或消失。这是因为拟杆菌既能利用外源饮食底物,也具备分解宿主来源物质(如黏液多糖)的能力,相当于同时依赖“外部供给”和“内源资源”,因此在生态中具有较强的稳定性与持续性。
3
菌群的”弹性恢复”
肠道菌群具有生态学中的”恢复力”特征,即受到扰动后能够恢复到原来状态的能力。
研究发现,饮食等因素可以引起肠道菌群的短期波动,但个体的整体菌群结构通常具有较强稳定性,并会在一段时间后恢复到原有状态。
这说明肠道菌群更像是一个具有“稳态恢复力”的动态系统,而非简单的线性变化过程。系统中存在一个相对稳定的“基线结构”,拟杆菌作为核心类群之一,往往处于这一稳态中。因此,补充益生菌可能带来暂时性改变,但一旦干预停止,菌群结构往往会在内在调控机制作用下回归原有状态。
4
多数干预没有触及”底层资源结构”
现在很多干预无效的原因是没有触及拟杆菌优势的根本基础:
益生菌:增加某些菌,但不改变食物结构;
短期饮食调整:改变输入,但不改变长期生态位;
抗生素:强干扰,但系统会重建原有结构。
拟杆菌的优势来自长期稳定的资源体系和与宿主的共生关系,它是结构性变量,而不是短期响应变量。
5
菌群-宿主共同稳定
拟杆菌的稳定不仅是菌群内部稳定,而是“菌群-宿主共同稳定”系统:宿主免疫系统”允许它存在”,它反过来调节免疫和代谢。
这意味着想改变拟杆菌,不只是改菌,而是要改”宿主+菌群”这个整体系统,这使得改变非常困难。
小编总结
拟杆菌之所以容易成为主导菌群且难以被干预改变,主要源于其“代谢广谱 + 生态位稳固 + 系统稳态”三重优势:一方面它拥有丰富的多糖利用基因簇,既能分解多种膳食纤维和抗性淀粉,也能在外源营养不足时转而利用宿主分泌的黏蛋白作为能量来源,因此不易被“饿掉”;另一方面其对肠道环境具有很强适应性(耐胆汁、适应高脂高蛋白饮食),并能贴附肠黏膜占据底层生态位,使其他菌群难以替代;同时肠道菌群整体具有显著的稳态和回弹能力,导致短期饮食改变或单一益生菌补充往往难以撼动其主导地位。
因此,干预的关键不在“添加某种菌”,而在于系统性重塑生态结构:从长期看,应持续3–6个月以上提高膳食纤维的种类与来源多样性(蔬菜、豆类、全谷物、菌菇等),增加抗性淀粉摄入,降低高脂及动物蛋白比例,从而为丁酸菌、双歧杆菌等竞争菌创造优势生态位;从短期看,可结合益生元(如菊粉、FOS)、多酚类食物(茶、可可、浆果)以及阶段性高纤维低脂饮食作为“扰动手段”,帮助打破原有稳态,但必须与长期饮食结构配合才能维持效果。
总体而言,科学上更现实的目标并非清除拟杆菌,而是降低其过度主导、提升菌群多样性与功能稳定性;目前最可靠且可持续的策略仍是以长期饮食结构调整为核心,辅以针对性短期干预,逐步实现肠道生态的再平衡。
主要参考文献:
Johnson EL, Heaver SL, Walters WA, Ley RE. Microbiome and metabolic disease: revisiting the bacterial phylum Bacteroidetes. J Mol Med (Berl). 2017 Jan;95(1):1-8.
Shin JH, Tillotson G, MacKenzie TN, Warren CA, Wexler HM, Goldstein EJC. Bacteroides and related species: The keystone taxa of the human gut microbiota. Anaerobe. 2024 Feb;85:102819.
Suzuki TA, Worobey M. Geographical variation of human gut microbial composition. Biol Lett. 2014 Feb 12;10(2):20131037.
Nomura K, Ishikawa D, Okahara K, Ito S, Haga K, Takahashi M, Arakawa A, Shibuya T, Osada T, Kuwahara-Arai K, Kirikae T, Nagahara A. Bacteroidetes Species Are Correlated with Disease Activity in Ulcerative Colitis. J Clin Med. 2021 Apr 17;10(8):1749.
Koliada A, Syzenko G, Moseiko V, Budovska L, Puchkov K, Perederiy V, Gavalko Y, Dorofeyev A, Romanenko M, Tkach S, Sineok L, Lushchak O, Vaiserman A. Association between body mass index and Firmicutes/Bacteroidetes ratio in an adult Ukrainian population. BMC Microbiol. 2017 May 22;17(1):120.
Davenport ER, Mizrahi-Man O, Michelini K, Barreiro LB, Ober C, Gilad Y. Seasonal variation in human gut microbiome composition. PLoS One. 2014 Mar 11;9(3):e90731.
Wexler AG, Goodman AL. An insider’s perspective: Bacteroides as a window into the microbiome. Nat Microbiol. 2017 Apr 25;2:17026.
Magne F, Gotteland M, Gauthier L, Zazueta A, Pesoa S, Navarrete P, Balamurugan R. The Firmicutes/Bacteroidetes Ratio: A Relevant Marker of Gut Dysbiosis in Obese Patients? Nutrients. 2020 May 19;12(5):1474.
谷禾健康
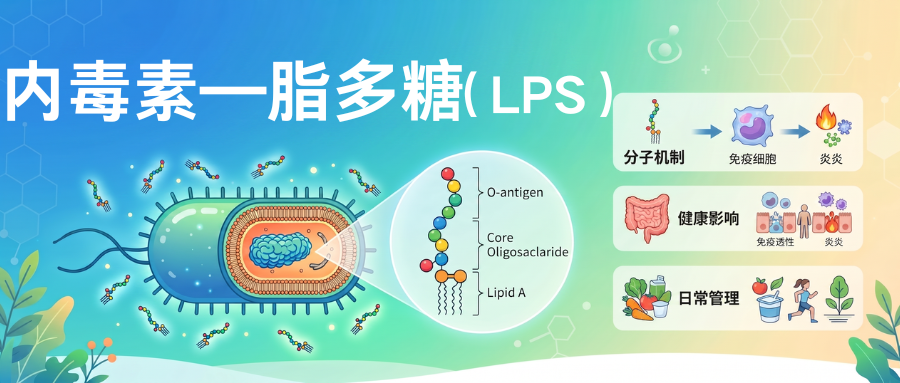
你是否有过这样的经历:明明没有剧烈运动,却总是感到莫名的疲惫;或者明明控制了饮食,体重却依然居高不下,体检报告上的血糖、血脂指标也总是亮起红灯?我们习惯将这些问题归咎于“吃多了”或“动少了”,却往往忽视了一个潜伏在身体内部、肉眼不可见的“隐形杀手”——脂多糖(LPS)。
脂多糖并非外来入侵的毒素,而是我们肠道中数以万亿计细菌的细胞壁成分。在正常情况下,它安分守己地待在肠道内,甚至对免疫系统有益。然而,当肠道屏障受损或饮食结构失衡时,这些本不该进入血液的分子便会“越狱”,引发一场悄无声息却破坏力巨大的全身性慢性炎症。
这种持续存在的低水平炎症,被认为是代谢综合征、2型糖尿病、非酒精性脂肪性肝病以及动脉粥样硬化等多种慢性疾病的重要共同发病基础。脂多糖(LPS)在这一过程中发挥关键作用,可诱导并放大炎症反应,从而促进相关疾病的发生与发展。
那么,脂多糖是如何由肠道内的正常成分转变为影响机体健康的重要因素的?机体又可以通过哪些机制对其进行调控,以维持生理稳态?本文将从机制层面系统分析LPS的作用路径及其对健康的影响。
♥
▸ 脂多糖的定义与特性
脂多糖(Lipopolysaccharide,简称LPS)是革兰氏阴性菌细胞壁外膜特有的结构大分子复合物,由三个功能区域共价连接组成的异源多糖-脂质复合物,三个区域分别承担不同生理功能。
革兰氏阴性菌膜由两层细菌膜组成,分别是外层和内层膜,外膜富含脂多糖(LPS)。
脂多糖(LPS)是两性分子,类脂A部分疏水,多糖部分亲水,所以LPS能够在细菌表面形成稳定的双亲结构,维持外膜完整性,同时作为屏障抵抗抗菌物质进入细菌体内。
↘ 脂多糖与内毒素的关系
脂多糖之所以被称为”内毒素”,是因为它是革兰氏阴性菌细胞外膜的重要结构成分,通常不以游离形式主动分泌。在细菌死亡或裂解时会大量释放出来,这一特点与由活菌主动分泌的“外毒素”形成鲜明对比,因此得名“内毒素”。
↘ 内毒素与外毒素的主要区别
编辑
需要注意的是,在感染过程中,细菌不断生长和死亡,会持续释放脂多糖;而在严重感染或抗生素治疗后,大量细菌同步裂解,可能在短时间内释放大量LPS,从而加重炎症反应,严重时可引发内毒素相关的全身炎症反应综合征。
▸ 脂多糖的分子结构
LPS分子从内到外分为三个部分:最内层是类脂A,中间是核心多糖,最外层是O抗原(O特异性多糖),三个部分共价连接形成完整LPS分子。
编辑
doi.org/10.3389/fimmu.2025.1588129
★ 每个部分结构和功能都不同:
•类脂A:嵌入外膜磷脂双层,是LPS的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构;
•核心多糖:连接类脂A和O抗原,结构相对保守,是革兰氏阴性菌共同抗原成分;
•O抗原:最外层,是多糖重复单位,结构变异性最大,决定细菌血清型特异性,是细菌逃避免疫识别的重要方式。
编辑
doi.org/10.5217/IR.2014.12.2.90
这种三层结构设计是革兰氏阴性菌长期进化结果,它既保护细菌本身,也决定了它和人体免疫系统相互作用方式,类脂A是毒性中心,O抗原是免疫逃逸,这种结构对应功能的关系便于更好理解它对健康影响。
★ 脂多糖的结构多样性决定其生物活性差异
不同革兰氏阴性菌的脂多糖(LPS)在结构上存在显著差异,尤其是类脂A部分在酰基链数量、长度以及磷酸化修饰上的变化,会直接影响其免疫激活能力。因此,并非所有革兰氏阴性菌的LPS都具有相同毒性,共生菌来源的LPS通常显著低于典型致病菌。
很多人将“革兰氏阴性菌”与“强内毒素”直接等同,但实际上,不同细菌来源的LPS在毒性上差异很大。理解这种差异,有助于我们更准确地区分共生菌与致病菌的生物学影响。
↘ 类脂A:脂多糖的毒性中心和生物活性中心
类脂A嵌入外膜磷脂双层,是脂多糖的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构。LPS的大部分生物学活性,包括毒性和免疫刺激性,都由类脂A部分决定,类脂A结构变异直接改变LPS毒性强弱,六酰化饱和类脂A毒性最强,酰基链减少毒性显著下降。
编辑
doi.org/10.5217/IR.2014.12.2.90
不同来源的类脂A结构与毒性差异:
•致病菌(如大肠杆菌、沙门氏菌):类脂A多为六酰化,且具有完整的双磷酸结构,与TLR4-MD2亲和力高,能够强烈激活免疫反应。
•肠道共生菌(如拟杆菌属):类脂A通常为五酰化或四酰化,并伴随去磷酸化或其他修饰,与受体结合能力较弱,炎症活性显著降低(在部分实验中可低几个数量级)。
•环境调控型细菌(如耶尔森氏菌):其类脂A结构可随温度变化而调整,在环境温度下多为低酰化形式,而在37℃宿主体内转为高酰化形式,从而增强毒性。
编辑
doi: 10.1128/mSystems.00046-17.
如上图所示,拟杆菌门(Bacteroidetes)是人类肠道微生物群中脂多糖(LPS)生物合成能力的主要贡献者。
↘ 核心多糖:连接类脂A和O抗原的保守结构
核心多糖位于类脂A和O抗原之间,主要作用是连接两个部分,它的结构相对保守,在同一属的不同细菌之间结构大多相似,含有特殊的糖分子庚糖和KDO。
核心多糖可以分为两个部分:
•内核心:靠近类脂A,含有特殊的糖分子:3-脱氧-D-甘露-辛酮糖酸(简称KDO)和L-甘油-D-甘露庚糖,这两种糖在其他地方很少见,是LPS核心多糖特征性成分。内核心结构非常保守,不同革兰氏阴性菌之间变化很小。
•外核心:连接内核心和O抗原,由己糖组成,结构比内核心变异大一些,但仍然比O抗原保守很多,同一属细菌外核心结构相似。
核心多糖带有多个负电荷,能够结合二价阳离子比如镁离子钙离子,这些阳离子中和负电荷,稳定LPS在细菌外膜的结构,如果去掉阳离子,LPS结构将变得不稳定,外膜通透性增加,细菌容易被抗菌物质杀死。
↘ O抗原:决定细菌特异性的高度变异部分
O抗原是LPS分子最外层的多糖重复单位,是LPS中变异性最大的部分,不同血清型革兰氏阴性菌O抗原结构不同,这种高度变异是细菌逃避免疫识别的重要进化策略。O抗原高度变异直接关系到细菌致病性和免疫识别,但是O抗原本身基本没有毒性,主要影响细菌免疫原性和致病性,不直接影响LPS毒性强弱。
O抗原由多个相同的寡糖重复单位聚合而成,每个重复单位通常含有2-6个糖分子,不同细菌重复单位的糖组成、排列顺序、连接方式都可以不同,所以变异非常大,理论上可以产生成千上万种不同O抗原结构。
实例:E. coli O157:H7(常见的致病性肠出血性大肠杆菌)与E. coli O26、O111等其他血清型的区别,本质上就是O抗原多糖重复单位的结构不同。有的重复单位含有不同种类的糖(葡萄糖、半乳糖等),有的糖连接方式不同(α-1,3还是β-1,4),排列顺序也不同。因此针对O157的抗体一般难以有效识别O26等其他血清型,但在个别情况下可能存在有限的交叉反应。
▸ 光滑型脂多糖和粗糙型脂多糖的差异
完整脂多糖(LPS)含有O抗原叫做光滑型LPS,缺失O抗原只剩下类脂A和核心多糖叫做粗糙型LPS,也叫脂寡糖(LOS),两者在稳定性、免疫原性和致病性上都有显著差异。
编辑
编辑
doi.org/10.3390/ijms24098395
LPS(脂多糖)结构示意图:图中亮红色的LPS锚定在革兰氏阴性(G-)细菌的外膜上。根据O抗原和核心区(core)的长度,可将LPS分为光滑型(S)、半粗糙型(SR)、粗糙型(R)和深度粗糙型(DR)。从LPS最外层到最内侧疏水部分,其结构变异性逐渐降低。
♥
▸ 脂多糖对革兰氏阴性菌生存的影响
脂多糖(LPS)不仅仅是致病因子,它对革兰氏阴性菌自身生存具有非常重要的生理功能,维持外膜结构完整性,抵抗抗菌物质入侵,保护细菌生存,虽然部分菌株即使缺失或改变LPS结构仍可存活,但是其生理功能和适应性会显著受损。
脂多糖对革兰氏阴性菌的主要生理功能:
①维持外膜结构完整性:脂多糖是革兰氏阴性菌外膜主要成分,占外膜干重三分之一以上,LPS分子通过二价阳离子交联形成稳定网状结构,维持外膜通透性和结构完整性,如果缺失LPS,外膜结构破坏,细菌存活能力下降。
②形成通透屏障抵抗抗菌物质:LPS外层亲水内层疏水,形成选择性通透屏障,能够阻挡疏水抗菌物质、胆汁盐、补体、溶菌酶进入细菌体内,保护细菌免受宿主防御物质和抗生素攻击,增加细菌耐药性。
③抵抗宿主免疫攻击:O抗原能够保护细菌不被补体激活和吞噬细胞吞噬,帮助细菌逃避免疫清除,增加细菌致病性,有O抗原的菌株更容易引起全身性感染。
④介导细菌粘附:LPS能够介导细菌粘附到宿主黏膜上皮细胞,帮助细菌定植,这是感染第一步,所以LPS对细菌定植也很重要。
因为脂多糖对细菌生存这么重要,所以几乎所有革兰氏阴性菌都必须合成LPS,只有极少数例外,比如某些衣原体可以缺失。
▸ 肠道中的脂多糖与人体屏障系统
据估计,人类结肠中含有约10¹³–10¹⁴个细菌,总生物量约为数百克(通常约0.2–0.5 kg)。这些细菌在生命活动过程中可产生脂多糖(LPS)。研究表明,以大肠杆菌为代表的革兰氏阴性菌,其单个细胞所含LPS约为几飞克至几十飞克(约2–50fg)。基于此进行粗略估算,肠道中LPS的总量大致处于几十毫克至数百毫克的范围,具体取决于菌群组成及生理状态。
然而,静脉注射LPS的致死剂量仅为1–2微克。也就是说,肠道内的LPS总量,可能是致死剂量的千倍甚至百万倍。那么为什么我们不会被”毒死”?答案在于——人体的屏障系统。
↘ 肠道屏障:把”危险”关在门外
人体的上皮组织(比如肠道内壁)在进化过程中,形成了极其高效的防御结构,能够将有害物质隔离在外。
在正常情况下,肠道细菌及其产生的LPS主要存在于肠腔内部,它们被粘液层和上皮细胞牢牢阻挡,不会接触到体内的深层组织。
研究发现,只要这些细菌停留在肠腔一侧,就不会对肠道细胞造成伤害。真正的危险发生在当LPS接触到上皮细胞”背面”(基底侧)时,毒性才会显现。
↘ 肠道屏障破坏的风险因素
当肠道屏障被破坏时,情况就会发生改变:细菌可能穿过粘液层,从细胞之间的缝隙渗透,甚至直接穿过细胞进入更深层组织。一些致病菌本身就具备”入侵能力”,可以主动突破防线。一旦细菌或大量LPS进入血液,免疫系统会迅速响应,但如果负荷过高,可能引发严重后果,比如全身炎症反应、败血症甚至败血性休克。
以下人群风险更高:
-新生儿(免疫系统尚未成熟);
-老年人或重症患者;
-免疫功能受损的人群;
-长期使用导尿管等侵入性器械者;
-肠道存在炎症、损伤或肿瘤的人。
▸ 肠道暴露导致脂多糖转移到循环中
在正常生理条件下,血浆中LPS水平极低。这是因为健康的肠道限制了LPS分子进入血液的途径。尽管持续暴露于LPS,肠细胞和结肠细胞对这些刺激表现出低反应状态,部分原因在于这些细胞中Toll样受体4(TLR4)表达较低。这种肠道耐受机制最大限度地减少了肠腔内的炎症反应。
此外,肠道微生物群中LPS的暴露在免疫系统的发育和成熟中起着关键作用,训练肠道相关淋巴组织(GALT)中的调控T细胞。个体的LPS谱系取决于肠道微生物群的组成,而肠道微生物群的组成因地理和生活方式等因素而有所变化。
▸ 脂多糖在肠道中”常态存在”的生理意义
很多人一听说脂多糖(LPS)有害,就想把肠道里的LPS彻底清除。实际上,这既不现实,也没有必要。相反,维持生理范围内的LPS暴露,对健康是有意义的。
在健康婴儿、成年人和老年人肠道菌群中,革兰氏阴性菌占有一定比例(如拟杆菌门)。这些细菌在更新过程中会不断死亡、裂解,从而释放LPS到肠腔中。因此,肠道内持续存在低水平LPS是一种正常的生理现象,而不是异常状态。生理水平的脂多糖具有以下作用:
•促进免疫系统正常发育:无菌动物由于缺乏包括LPS在内的微生物刺激,免疫系统发育不成熟,免疫应答能力不足,更容易出现过敏和自身免疫问题。适度的LPS等刺激有助于免疫系统建立“耐受”和”分辨能力”,这是”卫生假说”的重要机制基础之一。
•维持先天免疫的基础警戒状态:低水平的微生物信号可以让机体免疫系统保持”准备状态”。如果完全缺乏这类刺激,机体在真正遇到病原体时,可能反应迟缓,反而更容易感染。
•有助于睡眠:2024年发表的一项研究表明当LPS注入门静脉循环时,会引起睡眠增加和体温升高。门静脉循环负责将来自胃、小肠和大肠(这些器官中存在肠道微生物群)的血液输送到肝脏。像LPS这样的微生物分子可以通过“转位”过程进入门静脉,从而进入宿主体内环境。
编辑
事实上,在健康的人类、大鼠和小鼠体内,脂多糖天然存在于门静脉和全身循环血液中,是一种来源于原核生物的生理性血浆成分。
研究进一步暗示日常生活中的一些刺激会进一步促进LPS的转位,从而提高其在血液中的水平。例如,一顿高脂餐(如三片涂有50克黄油的吐司)可使人体血浆LPS水平升高约50%。此外,少量饮酒、急性或慢性睡眠不足以及轻度心理压力等常见情况,也都会增加循环中的LPS水平。
!
关键观点
问题不在”有没有”,而在”是否过量”。真正有害的是脂多糖异常升高并进入循环(如肠屏障受损导致的”内毒素血症”),这会诱导慢性低度炎症,进而与代谢性疾病等相关。因此,我们关注的重点不是”全部消灭LPS”,而是避免其异常升高和大量入血。
♥
▸ 肠道是人体内脂多糖的主要来源
在健康成年人中,肠道是体内LPS(脂多糖)最主要的产生和储存场所。健康成年人肠道内约有10¹³–10¹⁴数量级的微生物,其中约20%–40%为革兰氏阴性菌(以拟杆菌门为主),这些细菌在持续更新过程中不断裂解并释放LPS。
相比之下,口腔(如牙周炎时)虽也可产生LPS但总体规模较小,呼吸道和皮肤等部位菌量更低,对全身LPS贡献有限,但是注意在严重局部感染或全身感染时,这些部位也可能成为重要来源。
▸ 关键分界:是否进入循环
一个非常重要但常被忽略的点是:肠道中LPS很多≠血液中LPS一定高。
↘ 在健康状态下:
•肠道屏障(上皮细胞+紧密连接+黏液层+IgA)有效阻挡LPS进入体内;
•只有极少量LPS可进入循环;
•血浆LPS通常处于低水平(常见报道为pg/ml级别);
•这个水平属于生理暴露,不会引发系统性炎症。
↘ 何时变成问题?当出现以下情况时:
•肠道屏障受损(如”肠漏”);
•肠道菌群失衡(如革兰阴性菌过度增殖);
•高脂饮食促进LPS转运(经乳糜微粒)
就会导致进入循环的LPS增加(而不是肠道LPS本身增加才是关键),这就是所谓的代谢性内毒素血症,其特点是:
•血中LPS轻度但持续升高;
•激活TLR4等炎症通路;
•诱导慢性低度炎症;
•并与胰岛素抵抗、肥胖、非酒精性脂肪肝、动脉粥样硬化相关。
代谢性内毒素血症的经典模型认为,LPS可能进入全身循环并促进慢性炎症。该经典模型指出:
(1) 西式饮食可能增加产生LPS的细菌数量并增加脂肪吸收。
(2) LPS可在局部发挥作用并诱导炎症反应,也可通过刷状缘的移位转运以及在乳糜微粒内进入全身循环。
(3) 主要来源于肝脏的LBP与循环中LPS的脂质A部分结合。
▸ 脂多糖进入血液循环的主要途径
LPS从肠道进入血液循环主要通过两条途径:一是肠道通透性增加(肠漏)导致经细胞间隙进入循环,二是在脂肪吸收过程中结合乳糜微粒,经淋巴系统进入血液。这两条途径共同影响体内LPS的总体水平。
↘ 第一条途径:肠漏(细胞间隙通透增加)
当肠道上皮紧密连接受损,细胞间隙通透性增加,LPS可以从肠腔进入黏膜下组织,并进一步进入门静脉循环。这一过程不依赖脂肪摄入,而主要取决于肠屏障完整性。长期通透性升高,是循环LPS持续升高的重要原因之一。
↘ 第二条途径:乳糜微粒转运
LPS具有一定亲脂性。在摄入脂肪后,肠道形成乳糜微粒以吸收和运输脂类物质,部分LPS可结合在乳糜微粒上,随其进入淋巴系统,最终进入体循环。这一过程与脂肪摄入量相关:脂肪摄入越多,乳糜微粒生成越多,LPS转运量也可能相应增加。这也是高脂餐后出现”餐后内毒素血症“的一个重要机制。
这两条途径通常同时存在:肠道通透性决定基础LPS水平,而餐后乳糜微粒可造成短时升高,两者叠加,可能导致整体水平上移。
★ 短时过量脂肪摄入可能导致脂多糖过多的危害
当长期高脂摄入、频繁产生大量乳糜微粒,或肝脏清除能力下降时,可能出现LPS清除不及、循环水平升高的情况,从而与慢性低度炎症相关。
因此,并不需要避免脂肪摄入本身,而是应关注总量与分配:避免单次摄入过多脂肪,有助于降低一次性LPS负荷。只要控制每餐脂肪量,不要一次摄入太多脂肪,减少单次转运LPS量,就不会对健康造成危害,完全禁止脂肪摄入也不利于健康,关键是量和频率。
这个也解释了为什么中国人说“饱食伤身”,一次吃太多脂肪不仅热量过剩,还带来大量LPS进入循环,导致一次炎症峰,反复多次就是慢性炎症,所以吃七八分饱不仅减少热量,也减少LPS,对健康更有利。
♥
▸ 脂多糖的半衰期与清除动力学
LPS在人体内的半衰期取决于其浓度和人体解毒能力。生理低剂量LPS进入循环后,半衰期大约是几分钟到十几分钟,能够被肝脏快速清除,但是高剂量LPS超过肝脏清除能力,半衰期显著延长,能够在循环中停留几个小时,持续激活炎症。
了解半衰期能够帮助我们理解为什么低剂量持续暴露比一次性高剂量更有害,为什么慢性持续LPS升高导致慢性病。
▸ 肝脏:清除循环LPS的主要器官
进入门静脉的脂多糖约有80–90%在肝脏被清除,主要由Kupffer细胞介导,肝脏因此成为清除循环LPS的关键器官。
正常肝功能有助于维持低水平LPS,而功能受损时清除能力下降,易导致其升高。除直接吞噬外,LPS还可与LDL、HDL等血浆脂蛋白结合,并被肝细胞和Kupffer细胞摄取,从而进一步促进清除。
编辑
↘ 肝脏功能能够影响脂多糖的清除能力
因此,肝脏构成防止LPS进入体循环的重要屏障。肝功能正常,清除能力强,能够快速清除LPS,肝功能下降,清除能力下降,相同剂量LPS半衰期延长,炎症更明显,所以肝功能不好的人更容易发生内毒素血症。
编辑
▸ 肠道碱性磷酸酶对LPS的解毒作用
肠道上皮分泌的碱性磷酸酶(intestinal alkaline phosphatase, IAP)可通过去除LPS脂质A上的磷酸基团,将其转化为低毒形式,显著降低其激活TLR4-MD2受体的能力,从而减弱炎症反应。
↘ 碱性磷酸酶能够减弱脂多糖导致的炎症反应
这一过程发生于LPS进入体内之前,是肠道局部解毒的重要机制和防止系统性炎症的第一道屏障。IAP由小肠上皮刷状缘表达,直接与肠腔内LPS接触;其去磷酸化作用可使LPS炎症活性降低数十至数百倍。
动物研究表明,缺失IAP会增加对LPS的敏感性并加重炎症反应。IAP为含锌酶,锌对其结构稳定和催化活性至关重要,缺锌可降低其功能并增加活性LPS负荷。部分研究还提示,高脂饮食可能抑制IAP表达或活性,而低脂或特定膳食模式有助于维持其功能,但相关结论尚不一致。
▸ 低密度脂蛋白与脂多糖的相互作用
脂多糖(LPS)进入循环后,一部分游离存在,另一部分与低密度脂蛋白(LDL)结合。结合后,LPS的疏水结构被包埋于LDL颗粒内,减少与免疫细胞表面TLR4受体的接触,从而降低其炎症活性,这是一种机体的保护性机制。
↘ LDL与LPS的结合具有双重效应
然而,携带LPS的LDL更易被巨噬细胞通过清道夫受体摄取,促使其转化为富含胆固醇的泡沫细胞,进而在血管壁沉积形成脂纹,推动动脉粥样硬化的发生与发展。
因此,LDL与LPS的结合具有双重效应:既可降低游离LPS的炎症活性,又促进泡沫细胞形成和动脉粥样硬化进展。当LPS与LDL同时升高时,心血管风险显著增加,且两者具有协同放大效应。循环LPS水平升高会增强LDL的致动脉粥样硬化作用,这是其促进心血管疾病的重要机制之一。
▸ LPS清除的多器官协作(肝-脾-肾)
除肝脏外,脾脏和肾脏亦参与循环LPS的清除与代谢:肝脏为主要清除器官,脾脏提供辅助清除,肾脏负责排泄降解产物。整体上,网状内皮系统(单核-巨噬细胞系统)协同维持LPS稳态。
↘ 肝脏主要清除、脾脏辅助清除
进入循环的LPS大多由肝脏Kupffer细胞清除,其余部分可被脾脏巨噬细胞摄取。肾脏对完整LPS的直接清除有限,主要排泄其降解后的小分子片段,参与代谢末端处理。
LPS清除依赖单核-巨噬细胞系统的吞噬功能;当疾病、炎症或药物导致该系统功能下降时,清除效率降低、半衰期延长,循环水平升高并加重炎症反应。
总体而言,LPS清除体现多器官协同的分层防御:肝脏为核心屏障,脾脏补充清除,肾脏负责排泄。该体系功能正常时可有效控制LPS水平;若输入增加(如肠屏障受损或饮食因素)且清除能力下降(如肝功能或免疫功能减弱)并存,则可能突破防线,导致慢性低水平内毒素血症。
♥
▸ 肠道菌群失调
当肠道菌群失调时,菌群结构和代谢功能发生改变,可能导致脂多糖负荷及其炎症活性升高。肠腔中LPS水平上升,同时在饮食和屏障因素作用下进入循环的LPS增加。因此,通过改善菌群结构与代谢环境,可以从源头降低高炎症活性的LPS负荷。
健康成年人肠道中本就富含革兰氏阴性菌(如拟杆菌门)。但菌群失调(如高脂、低纤维饮食)会改变其结构,使部分菌群(尤其肠杆菌科)增加,同时短链脂肪酸等代谢产物减少,从而共同影响LPS相关效应。
不同来源的LPS免疫活性差异显著:拟杆菌来源LPS炎症活性较低,而大肠杆菌来源则更易诱导炎症。因此,关键不在于阴性菌数量多少,而在于高炎症活性LPS的比例是否上升。
↘ 在吸收方面,LPS进入循环主要通过:
•与脂质结合,经乳糜微粒转运(高脂饮食关键机制);
•肠屏障功能改变(紧密连接受损)。
因此,高脂低纤维饮食的作用是双重的:一方面改变菌群结构,另一方面显著促进LPS进入血液循环,共同提高循环LPS水平。
↘ 膳食纤维则通过不同路径发挥作用:
•促进产短链脂肪酸菌生长(如产丁酸菌);
•增强肠道屏障功能;
•调节菌群整体生态。
从而降低脂多糖相关炎症负荷。
这一机制把”菌群失调”和”慢性炎症”连接起来,但更准确的路径应理解为:
菌群失调 → LPS结构与负荷改变+代谢环境改变 → LPS更容易进入循环 → 诱导低度慢性炎症 → 胰岛素抵抗、脂肪肝、动脉硬化等问题 → 参与多种慢性疾病发生发展。
这里的关键,不是单一指标(比如阴性菌比例),而是菌群整体生态与宿主相互作用。所以,调节肠道菌群的核心,不是简单”降低革兰氏阴性菌”,而是恢复菌群结构与功能的平衡,从而降低高炎症活性的LPS负荷。
▸ 小肠细菌过度生长
正常情况下,小肠受胃酸和蠕动影响,细菌浓度远低于结肠(约10¹¹–10¹² CFU/ml的万分之一),因此LPS水平较低,即使全部吸收,总量也有限。
↘ 小肠细菌过度生长使脂多糖水平显著升高
发生小肠细菌过度生长(SIBO)时,小肠细菌增至10⁵–10⁸ CFU/ml,且多为革兰氏阴性菌,使腔内LPS浓度升高数十至上百倍。由于小肠吸收面积大、通透性高,更多LPS进入门静脉循环,导致循环水平升高。同时,SIBO还可损伤黏膜、破坏紧密连接,进一步增强LPS吸收,形成叠加效应。因此,不明原因的慢性LPS升高应考虑SIBO。
LPS的影响不仅取决于“数量”,还取决于“产生部位”:结肠产量高但吸收受限,小肠产量较低却更易入血。研究显示,SIBO患者循环LPS显著升高,根除后可下降并伴随症状改善,提示其为重要来源之一。这也解释了SIBO与多种肠外疾病的关联,即通过增加LPS吸收诱发全身慢性炎症。
▸ 牙周炎:被低估的”持续性LPS输入源”
牙周炎中,牙周袋内聚集大量革兰氏阴性厌氧菌(如牙龈卟啉单胞菌),持续释放脂多糖。在局部炎症和血管通透性增加的情况下,这些LPS可以进入血液循环,成为全身LPS负荷的长期来源之一。
很多人把牙周炎当作”口腔问题”,但忽略了一点:牙龈是一个高度血管化、长期暴露炎症的组织,这意味着,口腔里的炎症信号,是可以”进入全身”的。
↘ 牙周炎的核心环境是牙周袋:
•厌氧环境;
•大量革兰氏阴性菌;
•持续细菌更新与裂解释放脂多糖。
▸ 脂多糖与肠道屏障损伤的正反馈循环
脂多糖不仅可通过肠道进入循环,还可反过来破坏肠道屏障结构,增加通透性(”肠漏”),从而进一步促进LPS吸收,形成正反馈循环。
研究表明脂多糖可激活肠上皮细胞中的NF-κB通路,诱导炎症因子释放。这些炎症信号可导致紧密连接蛋白(如occludin、ZO-1)发生内吞和降解,从而破坏紧密连接结构。
结果是肠道通透性增加,使更多LPS从肠腔进入门静脉及全身循环。升高的LPS又进一步加重屏障损伤,形成循环:
LPS升高 → 屏障受损 → 通透性增加 → LPS吸收增加 → LPS进一步升高。
这一循环可持续放大低度慢性炎症状态。这表明一旦肠道屏障受损,单一干预往往难以逆转进程;同时降低LPS来源与修复屏障结构,可能更有助于打破这一循环。
▸ 其他升高脂多糖水平的风险因素
↘ 时间维度:停留越久→吸收越多(便秘)
便秘本质是”肠道内容物滞留”。停留时间延长→细菌裂解释放更多LPS + 与肠壁接触更久→吸收增加。同时伴随菌群失衡→进一步增加LPS来源。
结果:脂多糖”暴露时间+浓度”双升高。
↘ 屏障维度:肠道越”漏”→进入越多(压力/睡眠不足)
慢性压力通过皮质醇破坏紧密连接→肠道通透性增加。原本被阻挡的LPS更容易进入血液。同时压力还会改变菌群→增加LPS产生。
结果:LPS”通行能力”增强。
↘ 储存维度:储得越多→释放越久(肥胖)
肥胖不是单纯”多脂肪”,而是一个LPS放大系统:脂肪组织储存LPS并持续释放;菌群失调→产生更多LPS;肠道屏障变差→吸收更多LPS。
编辑
结果:LPS”长期维持在高水平”。
↘ 生活方式和饮食因素
多种生活方式和饮食因素通过”增加LPS产生+增加LPS吸收“两条路径,提高体内LPS水平:
•高脂饮食:一方面促进乳糜微粒把LPS带入血液,另一方面改变菌群增加革兰阴性菌→LPS显著升高。
•过量饮酒:破坏肠道屏障(肠漏)+ 改变菌群→更多LPS进入血液,加重肝脏炎症。
•吸烟:影响口腔和肠道菌群+ 破坏屏障→多来源增加LPS。
•膳食纤维不足:有益菌减少、短链脂肪酸下降→菌群失衡+ 屏障变差→LPS升高。
•长期抗生素:杀死有益菌、促使阴性菌占优势+ 损伤屏障→LPS增加。
♥
▸ LPS与TLR4的识别与信号传导
LPS通过与细胞膜上的Toll样受体4(TLR4)复合物结合,激活先天免疫细胞,其生物学效应由此启动。作为典型的病原体相关分子模式(PAMP),LPS被TLR4这一模式识别受体特异性识别。
↘ 脂多糖的识别过程需要多种蛋白质协同作用:
•LPS结合蛋白(LBP):首先结合循环中的游离LPS,从聚集体中提取LPS分子,并将其运输至CD14;
•CD14:将LPS转移至TLR4-MD2复合物;
•TLR4-MD2复合物:MD2蛋白结合LPS的脂肪酸A部分。结合后,MD2发生构象变化,导致TLR4二聚化并启动下游信号转导。
▸ TLR4多态性影响LPS敏感性与疾病风险
TLR4基因多态性(如Asp299Gly、Thr399Ile)可改变受体结构,降低其与LPS的结合亲和力和敏感性,从而减弱炎症反应,并影响慢性疾病的易感性。
因此,在相同脂多糖水平下,不同个体的炎症程度和疾病风险可存在显著差异。携带这些变异的个体炎症反应较低,动脉粥样硬化风险可能下降,但对革兰氏阴性菌感染的易感性及严重脓毒症风险增加,体现出权衡效应。相反,无变异者对LPS更敏感,更易发生强烈炎症反应及相关慢性疾病,需要更积极地控制LPS水平。
除上述多态性外,其他遗传变异亦参与调控LPS敏感性,共同决定个体差异。这也反映了遗传与环境的相互作用:环境决定暴露水平,遗传决定反应强度,两者共同影响疾病风险。
编辑
doi.org/10.3390/ijms24098395
▸ 脂多糖的免疫识别与炎症激活
↘ 识别与递呈(胞外阶段)
LPS在循环中先由脂多糖结合蛋白(LBP)结合并单体化,随后转移至CD14(mCD14或sCD14),再递交给TLR4-MD2复合物。MD2结合脂质A后诱导TLR4二聚化,启动信号转导。LBP和CD14提高了系统对低浓度LPS的敏感性。
↘ 两条主要信号通路(TLR4下游)
MyD88依赖通路(主要炎症通路):通过IRAK–TRAF6–TAK1–IKK级联,激活NF-κB,诱导TNF-α、IL-1β、IL-6等促炎细胞因子产生,是LPS炎症反应的核心机制。
TRIF依赖通路:在内体中激活TBK1–IRF3,诱导I型干扰素(IFN-α/β)产生,并促进共刺激分子表达,连接先天免疫与适应性免疫。
↘ 细胞内识别与炎症放大
NOD样受体(Nod1/Nod2)识别细菌肽聚糖成分(不是直接识别LPS),通过RIP2激活NF-κB,与TLR4信号协同放大炎症反应。
↘ 炎症小体激活(第二放大机制)
LPS作为”第一信号”诱导NLRP3和pro-IL-1β表达;ATP等作为”第二信号”激活炎症小体,caspase-1剪切成熟IL-1β,进一步放大炎症级联反应。
↘ 核心转录调控节点
NF-κB是关键汇聚点,几乎所有LPS诱导的促炎基因均依赖其激活,是慢性炎症持续存在的核心分子基础。
↘ 主要效应分子
TNF-α、IL-1β、IL-6共同介导LPS的炎症效应;CRP为IL-6驱动的临床替代指标,常用于炎症监测。
↘ 剂量决定结局
低剂量长期暴露:持续激活NF-κB → 慢性低级别炎症 → 代谢性疾病等。
高剂量急性暴露:细胞因子风暴 → SIRS/脓毒性休克。
♥
▸ 脂多糖与动脉粥样硬化
通常认为胆固醇是动脉粥样硬化的主要原因,但往往忽视了炎症因素,尤其是LPS对内皮细胞的直接激活作用。
血管内皮细胞表达TLR4和CD14。LPS与TLR4结合后激活NF-κB信号通路,诱导细胞间黏附分子-1(ICAM-1)和血管细胞黏附分子-1(VCAM-1)的表达。这些黏附分子为循环中的单核细胞和淋巴细胞提供黏附位点。
↘ 脂多糖作用于内皮细胞促进动脉粥样硬化
黏附的白细胞随后穿越内皮进入血管壁,单核细胞分化为巨噬细胞,摄取氧化低密度脂蛋白(oxLDL),形成泡沫细胞。泡沫细胞的聚集构成脂肪纹,这是动脉粥样硬化的早期病变。
此外,LPS还可诱导内皮细胞产生促炎细胞因子(如TNF-α、IL-6),进一步促进炎症反应、白细胞浸润及血管平滑肌细胞增殖,加速病变进展。
同时,LPS可通过增加活性氧生成、减少一氧化氮(NO)生物利用度,引发内皮功能障碍,表现为血管舒张能力下降及促凝状态增强。
因此,持续升高的LPS水平可通过直接作用于内皮细胞,促进动脉粥样硬化的发生和发展。
▸ 脂多糖与2型糖尿病及胰岛素抵抗
长期升高的循环LPS可激活脂肪组织、肝脏等处的巨噬细胞,促使其分泌TNF-α、IL-6等炎症因子。这些因子通过激活丝氨酸/苏氨酸激酶,促进IRS-1发生丝氨酸磷酸化,从而抑制其正常的酪氨酸磷酸化,阻断胰岛素信号传导,导致胰岛素抵抗。
↘ 降低脂多糖可改善胰岛素敏感性并降低血糖
在此状态下,β细胞需代偿性分泌更多胰岛素以维持血糖,但长期负担会导致功能衰竭,最终发展为2型糖尿病。研究表明,2型糖尿病患者循环LPS水平显著升高,而降低LPS可改善胰岛素敏感性并降低血糖,支持其在发病中的关键作用。
因此,糖尿病管理不应仅关注血糖,还应调节肠道菌群,从源头降低LPS水平。该机制也解释了部分体重正常者患病的原因:即使无肥胖,若存在菌群失调和LPS升高,仍可诱发炎症和胰岛素抵抗。对肠道菌群及LPS风险的评估,有助于实现更早期干预与预防。
▸ 脂多糖与非酒精性脂肪性肝病
肠道来源的脂多糖经门静脉直接进入肝脏。肝脏中的库普弗细胞高表达Toll样受体4(TLR4),可识别LPS并激活NF-κB信号通路,进而释放TNF-α、IL-1β等促炎细胞因子。
这些炎症因子一方面抑制肝脏胰岛素信号通路,降低脂肪酸氧化能力,促进甘油三酯在肝细胞内沉积,从而加重脂肪变性;另一方面可激活肝星状细胞,促进胶原合成和细胞外基质沉积,推动肝纤维化进展。
随着炎症持续存在,疾病可由单纯性脂肪肝逐步发展为非酒精性脂肪性肝炎(NASH),甚至进一步进展为肝纤维化和肝硬化。
↘ NAFLD患者存在脂多糖水平显著升高
研究显示,非酒精性脂肪性肝病(NAFLD)患者的门静脉及循环LPS水平显著升高;而降低LPS水平可减轻肝脏炎症反应,改善脂肪变性及纤维化程度,进一步支持LPS在NAFLD中的关键作用。
这一机制同样解释了为什么部分不超重、无饮酒史的人群仍会发生NAFLD:即使没有传统代谢风险因素,肠道菌群失调导致的LPS升高,依然可以驱动肝脏炎症和疾病进展。
▸ 脂多糖与高血压
↘ 脂多糖通过减少NO生成提高血管张力并升高血压
脂多糖可激活血管内皮细胞NF-κB通路,诱导促炎因子释放,并抑制内皮型一氧化氮合酶(eNOS)表达与活性,减少NO生成。NO减少会削弱血管舒张、增强收缩,进而提高血管张力并升高血压。
同时,LPS可损伤内皮结构、增加血管壁僵硬度和外周阻力;长期炎症还促进血管重构,使高血压逐渐固定化。动物研究表明,慢性低剂量LPS可升高血压,而降低LPS水平有助于改善血压,支持其在血压调控中的作用。
▸ 脂多糖与肥胖的相互促进
肥胖可促进脂肪组织炎症和脂多糖蓄积,而LPS介导的炎症又进一步干扰能量代谢、促进脂肪储存,二者形成相互促进的正向循环。
编辑
↘ 脂多糖干扰能量代谢、肥胖又促进脂多糖积累
此外,LPS还可能通过影响下丘脑能量调节,干扰食欲和能量摄入,进一步推动体重增加。
研究表明,减重可降低脂肪组织炎症和LPS负荷,改善胰岛素敏感性,从而有助于打破这一循环。
这一循环提示,单纯依赖热量限制可能不足以优化代谢状态;若同时改善肠道菌群、降低LPS水平,可能更有助于提高减重效果和代谢改善程度。
▸ 脂多糖与神经系统疾病
循环LPS能够通过多种途径穿过血脑屏障进入脑实质,激活小胶质细胞产生炎症,所以外周LPS升高能够影响中枢神经系统功能,参与神经精神疾病发生发展。
LPS分子量大约10-20 kDa,属于大分子,但是研究证实,循环LPS能够穿过血脑屏障进入脑内,主要通过几个途径:
•血脑屏障上有特定转运系统:能够转运LPS进入脑内,低浓度LPS就能够转运;
•炎症能够破坏血脑屏障完整性:LPS本身引发外周炎症,炎症介质破坏血脑屏障,更多LPS能够进入脑内,形成恶性循环;
•绕过血脑屏障:LPS能够通过血脑屏障薄弱部位比如延髓最后区进入脑内,然后扩散到其他脑区。
↘ 脂多糖入脑激活小胶质细胞致炎
进入脑内的脂多糖能够激活小胶质细胞,小胶质细胞是脑内巨噬细胞,表达TLR4,激活后产生促炎细胞因子,引发神经炎症,损伤神经元,所以外周LPS升高能够增加中枢神经炎症,参与抑郁症、帕金森病、阿尔茨海默病发生发展。
LPS能够穿过血脑屏障进入中枢这个事实,把外周肠道LPS和中枢神经疾病连接起来了,肠道菌群失调→LPS升高→进入中枢→激活小胶质细胞→神经炎症→神经精神疾病,这个完整通路现在已经被越来越多研究证实,这就是”肠脑轴”重要分子机制,所以改善肠道菌群降低LPS,能够帮助预防和改善神经精神疾病。
这一机制也解释了为什么肠道菌群失调能够影响情绪和认知,脂多糖进入中枢激活炎症就是重要介导。
编辑
doi.org/10.1021/acschemneuro.8b00733
♥
1
质谱检测
脂质A中的脂肪酸为3-羟基脂肪酸(3OH-FAs),其链长和酰化模式具有多样性,并可能影响LPS的免疫原性。
由于酯化的3OH-FAs仅来源于脂质A,因此其水平可作为循环中LPS的替代指标。早期采用GC/MS对其进行分离和定量;近年来发展出HPLC/MS/MS方法,通过计算总3OH-FAs与游离3OH-FAs的差值来定量酯化部分,从而实现更高灵敏度和准确性的LPS检测。
2
血浆脂多糖定量
血浆LPS定量检测是评估内毒素血症的重要方法之一,常用鲎试验(LAL)可用于检测血浆中LPS水平,反映循环内毒素负荷。
LAL试验基于鲎变形细胞溶解物对LPS的反应,可通过比浊或显色方法进行定量,检测灵敏度可达皮克级别。
↘ 但需要注意:
血浆中存在多种干扰因素(如脂蛋白、蛋白结合等),可能影响检测结果,因此不同实验条件下数值存在一定变异。
不同研究中报告的参考范围有所差异,临床上更常用于相对变化和趋势评估,而非绝对诊断标准。血浆LPS检测可用于研究或特定情况下评估内毒素水平变化,但在实际应用中通常需要结合其他指标综合判断。
3
炎症标志物间接反映
脂多糖可激活免疫系统,诱导IL-6等炎症因子释放,进而促进肝脏合成CRP,因此CRP和IL-6可以反映炎症反应水平。但需要强调的是CRP和IL-6是非特异性炎症指标,会受到感染、损伤、慢性疾病等多种因素影响。
在排除急性感染等因素的前提下,CRP(尤其hs-CRP)可以作为低度慢性炎症的实用监测指标,用于跟踪干预效果,但不能单独用于判断LPS水平。
4
肠道菌群检测推断LPS产生潜力
通过16S rRNA或宏基因组测序分析肠道菌群组成,可以从菌群结构角度推断LPS产生潜力,用于评估风险趋势。
LPS来源于革兰氏阴性菌,因此其相对丰度与LPS产生潜力相关,但这种关系是间接的、受多因素影响。
例如:
拟杆菌门虽为革兰阴性,但其LPS炎症活性差异较大,并非全部强致炎;
菌群功能、宿主状态、屏障功能等都会影响最终LPS水平;
菌群检测更适合用于风险评估和干预方向指导,而不是直接判断LPS实际水平。
5
谷禾健康肠道菌群检测评估LPS相关风险
谷禾报告对很多菌群多指标整合分析,可以更系统地评估LPS相关风险趋势,用于指导个体化干预。我们方法的价值在于从菌群结构和功能角度提供参考信息,但仍需结合临床指标(如炎症指标、代谢指标)综合判断。
↘ 高LPS风险的菌群特征
谷禾报告中高LPS风险通常表现为革兰氏阴性菌相对丰度偏高,伴随促炎菌增加、短链脂肪酸产生菌减少及综合评分升高,提示较高的LPS产生与炎症潜力。
典型特征包括:
•革兰氏阴性菌相对丰度升高→LPS来源增加(潜力增加);
•B/F比值升高→菌群结构向阴性菌倾斜;
•促炎革兰氏阴性菌增加→LPS炎症活性增强;
•短链脂肪酸产生菌减少→抗炎能力下降+屏障支持减弱;
•综合风险评分偏高→多因素叠加的结果。
这些特征反映的是LPS相关风险升高的趋势,提示需要从菌群和生活方式层面进行干预。
↘ 低LPS风险的菌群特征
低LPS风险通常表现为菌群结构相对平衡、短链脂肪酸产生能力良好、综合评分较低,提示LPS产生和炎症风险较低。
主要特征包括:
•革兰氏阴性菌比例在合理范围→LPS来源稳定;
•B/F比值平衡→菌群结构稳定;
•促炎致病菌未见明显富集→炎症驱动较低;
•短链脂肪酸产生菌充足→有助于抗炎和维持屏障;
•综合评分低→整体风险较低
低风险代表当前状态良好,但仍需维持健康饮食和生活方式以保持稳定。
6
结合肠道通透性综合评估LPS
LPS风险评估需要同时考虑“产生”和”吸收”两方面,即菌群结构与肠道通透性共同决定循环LPS水平。
关键理解三种情况:
•屏障受损(肠漏)时→即使LPS产生不高,也可能吸收增加;
•屏障正常时→即使LPS产生略高,进入血液的量可能有限;
•两者同时异常→LPS升高风险最大。
综合评估可以区分问题来源(“产多了”还是”漏多了”),从而更有针对性地干预,例如侧重调菌或修复屏障。
♥
1
修复肠道屏障—减少LPS吸收的根本措施
无论LPS升高的原因如何,修复肠道屏障是降低其进入循环的根本措施。完整的肠道屏障通过维持上皮细胞间的紧密连接,阻止LPS经细胞间隙进入血液;当屏障受损时,紧密连接蛋白减少、通透性增加,LPS更易入血。因此,恢复紧密连接完整性可有效减少LPS吸收并降低其循环水平。
①补充乳铁蛋白
乳铁蛋白是一种铁结合糖蛋白,可促进肠上皮细胞增殖与更新,维持紧密连接蛋白表达和屏障完整性,从而降低肠道通透性,减少LPS进入循环并降低其水平。
此外,乳铁蛋白具有特异性LPS结合结构域,能高亲和力结合并中和LPS,阻断其与免疫细胞膜TLR4受体结合,抑制下游炎症信号通路,减少促炎因子产生,从而直接抑制炎症反应。
②补充谷氨酰胺
肠上皮细胞更新迅速,需充足谷氨酰胺供能;其充足时可维持上皮更新和紧密连接蛋白合成,保持屏障完整与正常通透性,减少LPS经细胞间隙入血。
肠漏或屏障受损时,补充谷氨酰胺可促进上皮修复、增强紧密连接、降低通透性,从而减少LPS吸收,对此类人群尤为有益。
2
其他减少LPS吸收与转运的措施
①维生素D
可以上调紧密连接蛋白,降低肠道通透性,减少LPS跨上皮转运。
②改善便秘
缩短肠道转运时间,减少LPS在肠腔内累积及与肠壁接触时间,从而降低吸收机会。
③减轻压力+改善睡眠
通过降低HPA轴激活和皮质醇水平,改善紧密连接与肠屏障功能,减少LPS进入循环。
3
减少其他LPS产生来源
①治疗SIBO
小肠细菌过度生长增加潜在LPS来源,在肠屏障受损时更易转化为循环LPS,抗生素等针对性治疗可降低细菌负荷,从源头减少LPS产生。
②牙周治疗
牙周感染中革兰阴性菌持续释放LPS,可通过受损牙龈进入循环,系统治疗减少这一持续输入源。
4
控制每餐脂肪摄入
我们之前介绍过,吃完脂肪后,肠道合成乳糜微粒运输脂肪,LPS亲脂,结合到乳糜微粒上,随乳糜微粒进入淋巴循环,然后进入体循环,因此每餐脂肪越多,合成的乳糜微粒越多,进入循环的LPS越多,所以控制每餐脂肪量减少乳糜微粒,进而减少进入循环的LPS,降低循环LPS水平。
简单饮食调整:一餐不要吃太多脂肪,全天均匀分布脂肪,可以减少餐后LPS升高,减少累积炎症。
5
增加膳食纤维,黄酮、多酚等摄入
①芹菜素(apigenin)
芹菜素是一种广泛存在于温热带蔬果中的黄酮类化合物,在芹菜、洋甘菊和欧芹中含量较高,具有肠道靶向的抗炎作用。
其可调节肠道菌群、强化肠道屏障,从而减少LPS吸收;在高脂饮食诱导的肥胖模型中,补充芹菜素可显著降低全身LPS水平及相关低度炎症。
②菊粉(Inulin)
益生元纤维如菊粉可促进抑制LPS的共生菌生长,并增加短链脂肪酸(SCFAs)生成,从而修复肠黏膜。
在一项针对2型糖尿病女性的随机对照试验中,补充菊粉8周使血浆LPS较安慰剂下降27.9%,同时炎症因子和胰岛素抵抗显著改善。
这些效应主要归因于其对肠道菌群的调节和对紧密连接蛋白的增强,从而抑制LPS易位,表明膳食纤维是降低内毒素血症和炎症的可行策略。
③利福昔明
利福昔明是一种肠道特异性抗生素,针对革兰氏阳性和革兰氏阴性菌,且不进行全身吸收。通过重塑肠道微生物群,利福昔明可以降低内源性内毒素的产生。
在非酒精性脂肪性肝炎(NASH)患者中,28天的利福昔明治疗显著降低了血清内毒素水平(内毒素活性下降,P=0.03),同时肝酶和炎症标志物也有所改善。
④姜黄素
姜黄素可通过强化肠道屏障并解毒内毒素,减少LPS介导的炎症。在饮食诱导的代谢综合征啮齿动物模型中,姜黄素提高肠道碱性磷酸酶活性(去磷酸化并中和LPS),维持紧密连接结构,从而防止血浆LPS升高。
在高脂饮食的糖尿病大鼠中,姜黄素可使升高的血清LPS和TNF-α恢复至正常水平。这些作用与其重塑肠道菌群(增加有益菌)及直接抑制LPS诱导的肠道信号通路有关。初步人体研究亦支持其作为辅助干预,用于降低代谢疾病中的内毒素血症和炎症。
⑤膳食纤维的综合作用
膳食纤维不被人体消化,进入结肠后作为双歧杆菌、乳杆菌等革兰阳性有益菌的发酵底物,促进其增殖并相对降低革兰阴性菌比例,从而减少LPS生成。
有益菌发酵产生的短链脂肪酸具有抗炎作用并增强肠道屏障,降低LPS吸收,形成双重降LPS效应。其中丁酸盐既是能量来源,又可强化屏障功能,是膳食纤维降低LPS的重要机制之一。
6
调节肠道菌群,选择合适的益生菌
①从源头调整肠道菌群减少脂多糖产生
LPS由肠道革兰氏阴性菌产生;其比例升高会增加LPS生成。通过饮食调节促进革兰氏阳性有益菌生长、降低阴性菌比例,可从源头减少LPS产生并降低其循环水平,这种改变具有长期稳定性。
益生菌和益生元均有助于调节菌群,因此饮食干预是更为根本且可持续的策略。相比单纯依赖抗炎药物,从源头控制菌群更能长期维持LPS在正常水平,促进整体健康。
②施用以革兰氏阳性菌为主的益生菌
选择的益生菌应该以双歧杆菌、乳杆菌等革兰氏阳性菌为主,这些本身没有LPS细胞壁,不会给肠道额外增加LPS,同时抑制革兰氏阴性菌过度生长,减少总LPS产生。
避免选择含有大量革兰氏阴性菌的益生菌产品,这些会给肠道额外增加LPS,增加LPS负担,反而达不到降低LPS的效果。
7
抑制LPS诱导的炎症反应
①Omega-3脂肪酸
改变细胞膜结构与脂筏环境,影响TLR4信号复合体激活,并通过resolvins等介质促进炎症消退,从而减轻LPS炎症反应。
②小剂量阿司匹林
通过COX抑制及NF-κB通路调节发挥整体抗炎作用,同时抑制血小板聚集,降低LPS相关心血管风险(主要为系统性抗炎效应的一部分)。
8
减少脂肪组织LPS蓄积
LPS亲脂容易蓄积在脂肪组织中,脂肪组织质量越大,蓄积LPS总量越多,脂肪组织不断缓慢释放LPS进入循环,维持循环LPS持续低水平升高,减肥减少脂肪组织质量,LPS蓄积总量减少,释放进入循环的LPS减少,循环LPS水平下降。
减肥同时改善肠道菌群,减少革兰氏阴性菌比例,进一步减少LPS产生,多重机制共同降低循环LPS水平,因此肥胖症减少体重可以显著降低LPS水平。
9
不同LPS风险分层个体化干预策略
不同LPS风险程度需要不同强度干预策略,低风险维持健康生活方式,中风险饮食调整加针对性营养补充,高风险先排查继发性疾病针对性治疗,个体化干预更高效。
•低LPS风险:不需要特殊药物干预,维持低LPS饮食模式和健康生活方式,几个月复查一次即可,长期维持可以稳定保持低LPS。
•中度LPS风险:饮食调整基础上,针对性补充营养补充剂,比如益生元、益生菌、乳铁蛋白,根据是否存在屏障损伤选择修复屏障营养,3-6个月复查调整方案。
•显著LPS风险:先排查继发性疾病,常见继发性疾病是SIBO、牙周病、便秘,针对性治疗继发性疾病,治疗后继续生活方式维持。
根据风险分层选择不同干预强度,避免低风险过度干预浪费金钱扰乱菌群,高风险干预不足达不到效果,个体化分层干预平衡效果和安全性,更合理高效。
♥
很多人从未关注过脂多糖(LPS),也很少意识到它与常见慢性疾病之间的联系。通过本文的系统梳理,我们从结构、机制到疾病,再到干预路径,已经建立起一个相对完整的认知框架。
⑴脂多糖的基本特性
脂多糖由脂质A、核心多糖和O抗原构成,其中脂质A是主要的免疫活性结构。其物理化学性质较为稳定,一般灭菌手段难以完全去除其活性。
⑵代谢与清除路径
脂多糖主要来源于肠道菌群。正常情况下,肠道屏障可以限制其大量进入体内;进入循环后的LPS主要由肝脏清除。部分研究提示,脂肪组织在一定程度上也可参与LPS相关过程。
⑶致病机制
LPS可通过TLR4被机体识别,激活先天免疫系统,诱导TNF-α、IL-6等促炎因子释放。当这种激活处于长期低水平状态时,可对多组织产生慢性损伤。
⑷疾病关联
脂多糖升高与多种慢性疾病存在相关性,包括代谢综合征、2型糖尿病、非酒精性脂肪肝(NAFLD)、动脉粥样硬化、高血压、肥胖,以及部分神经系统疾病和自身免疫疾病等。但其作用通常是多因素共同参与的一部分。
⑸脂多糖升高的常见因素
高脂饮食、过量饮酒、吸烟、膳食纤维摄入不足、长期使用广谱抗生素,以及SIBO、牙周炎、便秘、慢性压力、睡眠不足和肥胖等,都可能通过不同路径影响脂多糖水平。
⑹检测与评估方式
脂多糖可以通过血浆检测进行评估,同时CRP等炎症指标可作为间接参考。结合肠道菌群检测,有助于从“产生—吸收—炎症反应”多个维度综合评估风险。
⑺干预基本原则
围绕三个核心方向展开:
•减少产生(调节菌群);
•减少吸收(修复肠道屏障);
•减少转运与炎症反应(饮食与系统状态调节)。
同时,对于SIBO、牙周炎等明确来源,应进行针对性处理,并结合个体情况进行分层干预。
脂多糖(LPS)是革兰氏阴性菌细胞壁的特有成分。在正常生理状态下,少量脂多糖进入循环,有助于维持基础免疫激活。
但当多种因素叠加,导致循环中LPS长期处于偏高水平时,机体会进入一种“慢性低度炎症状态”,这一状态被认为与多种慢性疾病的发生发展密切相关。因此,长期维持LPS在合理范围内,是慢性疾病预防与管理中一个值得关注的重要环节。
主要参考文献
Wassenaar TM, Zimmermann K. Lipopolysaccharides in Food, Food Supplements, and Probiotics: Should We be Worried? Eur J Microbiol Immunol (Bp). 2018 Aug 21;8(3):63-69.
Kim HS, Kim S, Shin SJ, Park YH, Nam Y, Kim CW, Lee KW, Kim SM, Jung ID, Yang HD, Park YM, Moon M. Gram-negative bacteria and their lipopolysaccharides in Alzheimer’s disease: pathologic roles and therapeutic implications. Transl Neurodegener. 2021 Dec 7;10(1):49.
Magdaleno F, Blajszczak CC, Nieto N. Key events participating in the pathogenesis of alcoholic liver disease. Biomolecules. 2017;7:pii:E9.28134813.
Gomes JM, Costa JA, Alfenas RC. Metabolic endotoxemia and diabetes mellitus: A systematic review. Metabolism. 2017;68:133–44.
Roth J, Blatteis CM. Mechanisms of fever production and lysis: lessons from experimental LPS fever. Compr Physiol. 2014;4:1563–604.
Tume R, El Sherbiny S, Bono R, Gautier T, Pais de Barros JP and Meroño T (2025) The balance between proinflammatory, “bad”, and immunomodulatory, “good”, lipopolysaccharide for understanding gut-derived systemic inflammation. Front. Immunol. 16:1588129.
Catorce MN, Gevorkian G. LPS-induced murine neuroinflammation model: main features and suitability for pre-clinical assessment of nutraceuticals. Curr Neuropharmacol. 2016
Laugerette F, Vors C, Peretti N, Michalski MC. Complex links between dietary lipids, endogenous endotoxins and metabolic inflammation. Biochimie. 2011;93:39–45
Neyen C, Lemaitre B. Sensing Gram-negative bacteria: a phylogenetic perspective. Curr Opin Immunol. 2016;38:8–17.
Candelli, M.; Franza, L.; Pignataro, G.; Ojetti, V.; Covino, M.; Piccioni, A.; Gasbarrini, A.; Franceschi, F. Interaction between Lipopolysaccharide and Gut Microbiota in Inflammatory Bowel Diseases. Int. J. Mol. Sci. 2021, 22, 6242.
Szentirmai, É., Buckley, K., Massie, A.R. et al. Lipopolysaccharide-mediated effects of the microbiota on sleep and body temperature. Sci Rep 14, 27378 (2024).
Citronberg JS, Curtis KR, White E, Newcomb PA, Newton K, Atkinson C, Song X, Lampe JW, Hullar MA. Association of gut microbial communities with plasma lipopolysaccharide-binding protein (LBP) in premenopausal women. ISME J. 2018 Jun;12(7):1631-1641.
Lin TL, Shu CC, Chen YM, Lu JJ, Wu TS, Lai WF, Tzeng CM, Lai HC, Lu CC. Like Cures Like: Pharmacological Activity of Anti-Inflammatory Lipopolysaccharides From Gut Microbiome. Front Pharmacol. 2020 Apr 30;11:554.
d’Hennezel E, Abubucker S, Murphy LO, Cullen TW. Total Lipopolysaccharide from the Human Gut Microbiome Silences Toll-Like Receptor Signaling. mSystems. 2017 Nov 14;2(6):e00046-17.
Apigenin Alleviates Obesity-Associated Metabolic Syndrome by Regulating the Composition of the Gut Microbiome.. Qiao Y, Zhang Z, Zhai Y, Yan X, Zhou W, Liu H, Guan L and Peng L. (Front. Microbiol. 12:805827. (2022))
Orange juice neutralizes the proinflammatory effect of a high-fat, high-carbohydrate meal and prevents endotoxin increase and Toll-like receptor expression.. Ghanim H, Sia CL, Upadhyay M, Korzeniewski K, Viswanathan P, Abuaysheh S, Mohanty P, Dandona P.. (Am J Clin Nutr. 2010 Apr;91(4):940-9.)
Oral spore-based probiotic supplementation was associated with reduced incidence of post-prandial dietary endotoxin, triglycerides, and disease risk biomarkers.. McFarlin BK, Henning AL, Bowman EM, Gary MA, Carbajal KM.. (World Journal of Gastrointestinal Pathophysiology. 2017;8(3):117-117.)
Effect of Probiotic Supplementation on Intestinal Permeability in Overweight and Obesity: A Systematic Review of Randomized Controlled Trials and Animal Studies.. DiMattia Z, Damani JJ, Van Syoc E, Rogers CJ.. (Adv Nutr. 2024 Jan;15(1):100162.)
Inulin controls inflammation and metabolic endotoxemia in women with type 2 diabetes mellitus: a randomized-controlled clinical trial.. Dehghan P, Gargari BP, Jafar-Abadi MA, Aliasgharzadeh A.. (Int J Food Sci Nutr. 2014 Feb;65(1):117-23.)
Efficacy of rifaximin on circulating endotoxins and cytokines in patients with nonalcoholic fatty liver disease.. Gangarapu, Venkatanarayanaa; Ince, Ali Tüzüna; Baysal, Birola; Kayar, Yusufa; Kiliç, Ulkanb; Gök, Özlemb; Uysal, Ömerc; Şenturk, Hakana.. (European Journal of Gastroenterology & Hepatology 27(7):p 840-845, July 2015.)
Rifaximin: beyond the traditional antibiotic activity.. Calanni, F., Renzulli, C., Barbanti, M. et al.. (J Antibiot 67, 667–670 (2014).)
Improvement of intestinal barrier function, gut microbiota, and metabolic endotoxemia in type 2 diabetes rats by curcumin.. Huang J, Guan B, Lin L, Wang Y.. (Bioengineered. 2021 Dec;12(2):11947-11958.)
谷禾健康
龋齿,俗称“蛀牙”,是在以细菌为主的多种因素作用下,牙齿硬组织被细菌代谢产生的酸逐渐溶解和破坏的过程,是一种常见的口腔疾病。其发生与口腔细菌密切相关,这些细菌如同潜伏的“隐形杀手”,悄然侵蚀牙齿。今天,我们将揭开龋病细菌学因素的神秘面纱,首先带大家认识导致龋齿的罪魁祸首——变异链球菌(Streptococcus mutans)。
变异链球菌(Streptococcus mutans),一种革兰氏阳性兼性厌氧菌,偶尔可在其他部位检测到,但主要定植于口腔,被视为龋齿的主要元凶之一。其能发酵多种糖类(膳食中的蔗糖、葡萄糖、果糖、乳糖等),主要产物是乳酸,酸的持续累积可导致牙釉质羟基磷灰石脱矿,从而引发并加重龋齿,这也是多吃糖更易蛀牙的原因。
编辑
<来源:谷禾健康口腔菌群检测数据库>
其关键毒力因子细菌素使其在早期牙菌斑中具备竞争优势,从而稳定定植于牙面;通过黏附蛋白与葡糖基转移酶(Gtfs)合成胞外多糖,增强附着并促进致密生物膜形成;同时凭借强产酸性与耐酸性共同推动龋齿发生。
同时,越来越多的动物实验和临床研究表明,变异链球菌的致病特性并不仅局限于牙齿损伤。其特性使其能在体液中规避免疫反应,既可附着于牙面,也可黏附血管内皮等组织,并诱发炎症反应,损害器官,参与系统性疾病的发生。已发现变异链球菌与心血管疾病、炎症性肠病、IgA肾病、非酒精性脂肪性肝炎以及肿瘤等多种疾病过程存在相关性。但因果关系尚未明确,还需要进一步剩余的临床研究。
本文将带你深入了解变异链球菌(Streptococcus mutans),并通过结合对变异链球菌的见解与针对生物膜的适当控制措施,为开发创新且有效的龋齿预防和治疗策略提供思路。
1
分类学与细胞形态
•分类:变异链球菌(Streptococcus mutans)属于厚壁菌门(Firmicutes)下链球菌科,链球菌属(Streptococcus)的物种。
•形态:细胞直径约为0.5-0.7μm,球菌,常成链、短链或成对排列;在致密生物膜中,可能表现出由细胞延长机制驱动的拉长或不规则形态,具有厚实的肽聚糖细胞壁和链球菌典型的磷壁酸,这些结构参与:黏附、免疫识别、生物膜稳定。
•革兰氏染色:革兰氏阳性菌(G⁺)。
•其他特征:无芽孢、无鞭毛(不具运动性)。
2
生长环境和生态位
•兼性厌氧菌:在需氧和无氧条件下都能生长,但偏好低氧生态位。
•温度:35~37°C。
•pH:对生长中性,但在酸性环境中(pH ~4)也能存活甚至保持代谢活跃。
•主要生态位:口腔牙面,特别是:咬合面窝沟、龋洞、牙菌斑。
•关键生态特征:变异链球菌很少以浮游形式存在,而是通过粘附蛋白和葡聚糖结合蛋白(Gbps)附着于牙釉质获得性膜及其他细菌;当蔗糖存在时,通过葡萄糖转移酶产生细胞外多糖(EPS),形成粘性基质以稳定生物膜结构。
生物膜中的转化速率可高于浮游形式多个数量级,促进水平基因转移和适应。
变异链球菌的生物膜形成
编辑
doi: 10.1128/microbiolspec.GPP3-0051-2018.
3
人群分布与定植
变异链球菌(Streptococcus mutans)在人类群体中广泛存在;定植与龋齿的形成密切相关。
•早期:多在儿童期“感染窗口”由照护者(多为母亲)传播,约2岁即完成定殖,学龄前及学龄期患病率进一步上升。
•成人:其可长期定殖于多数成年人,尤见于口腔卫生差或高糖摄入者。2025年一项系统综述/荟萃分析基于现代微生物组学证实,其存在及丰度与龋病显著相关。
•传播方式:垂直传播(母婴,如唾液接触)、水平传播(家庭成员间)。
4
代谢能力
•碳水化合物代谢(核心致病基础)
变异链球菌能发酵多种糖类(膳食中的蔗糖、葡萄糖、果糖、乳糖和淀粉衍生的寡糖),主要产物是乳酸。
变异链球菌的碳水化合物代谢
编辑
doi: 10.1128/microbiolspec.GPP3-0051-2018.
其中蔗糖在关键的双重作用中发挥作用:
1.通过糖酵解生成乳酸的底物;
2.通过葡萄糖转移酶和果糖转移酶合成细胞外多糖(EPS)的底物,产生不溶性葡聚糖促进牙齿釉质的附着和细胞间凝聚力,调节斑块扩散和养分分布的可溶性葡聚糖。
•产酸性
高糖解通量使碳水摄入后迅速产酸,将菌斑pH降至釉质脱矿临界值以下(约pH5.5)。
变异链球菌的酸应激耐受机制
编辑
doi: 10.1128/microbiolspec.GPP3-0051-2018.
•胞外多糖合成
核心酶:葡糖基转移酶(GTFs)
GtfB:促进细菌聚集;
GtfC:结合牙釉质;
GtfD:生成可溶性葡聚糖。
作用:
形成胞外多糖基质(EPS);
构建生物膜结构。
5
与其他细菌的互作
变异链球菌与口腔中多种菌群存在协同或拮抗相互作用,显著影响生物膜形成及致病性。
•与健康相关链球菌之间存在拮抗作用
一个典型的拮抗相互作用例子发生在变异链球菌与其他链球菌成员,如血链球菌(streptococcus sanguinis)和戈登链球菌(Streptococcus gordonii)之间。
具体来说,其他链球菌的一些成员分泌毫摩尔浓度的H2O2,这对变异链球菌具有高度抑制作用。另一方面,变异链球菌菌株不仅会产生对其他链球菌特异性的诱变剂,而且大多数菌株通常比其他物种更酸。这种拮抗关系在牙菌斑中变得更加明显,因此口腔共生链球菌(如血链球菌和戈登链球菌)的丰度(在健康牙菌斑内丰富)与变异链球菌(在龋齿病变中丰富)的丰度之间存在负相关关系。
•变异链球菌产生的乳酸可作为Veillonella碳源
虽然变异链球菌产生的乳酸对许多酸敏感的口腔共生菌的生长具有抑制作用,但乳酸却是口腔中一个流行的菌属韦荣氏球菌属(Veillonella spp.)的碳源。研究人员认为Veillonella可能起到“酸槽”的作用,防止牙齿生物膜达到极低的pH值。
这种营养互惠可能解释了韦荣氏球菌属与口腔中链球菌的密切关系,链球菌分泌乳酸作为碳水化合物发酵的废物。并且在双物种生物膜中,与单物种生物膜相比,变异链球菌和小韦荣氏球菌(veillonella parvula)形成独特的结构,对氯己定和其他抗菌药物的耐药性增强。
•变异链球菌可结合白色念珠菌增加致龋潜力
除细菌外,口腔亦常被酵母菌定植,其中白色念珠菌多见于口腔黏膜,并常与变异链球菌共存,在早期儿童龋中高丰度检出。
研究表明,变异链球菌GtfB可结合白色念珠菌表面甘露聚糖受体,增强其黏附与生物膜积累,从而提高致龋性;同时白色念珠菌产生的法尼醇可促进其胞外多糖合成。动物模型显示,两者共感染可显著增强生物膜致龋潜力,导致更严重的龋损。
•S.mutans与其他菌之间的相互作用(仅供参考)
促进:
Bacteroidales
Bacteroides
Odoribacter
Peptococcaceae
抑制:
Bifidobacterium
Coriobacteriales
Adlercreutzia
Collinsella
Porphyromonas
Prevotella
Clostridium
Clostridiales incertae sedis
Clostridiales Family XIII. Incertae Sedis
Blautia
Coprococcus
Dorea
Lachnospiraceae
Ruminococcaceae
Ruminococcus
Dialister
Campylobacteraceae
Erysipelotrichaceae
龋齿并不是一下子形成的,更像是一场发生在牙面微生态中的“慢性攻防战”。在这场战斗中,变异链球菌(S.mutans)扮演着关键角色。那么,变异链球菌究竟通过哪些具体机制主导这一过程?
研究发现,变异链球菌(S.mutans)的主要毒力由三大核心特性协同构成:
–粘附定植能力(Adhesion);
–强产酸性(Acidogenicity);
–耐酸性(Acid-tolerance)。
三者共同改变牙菌斑微生态平衡,使环境向致龋方向偏移,最终导致牙釉质脱矿,产生龋齿。
1
黏附与定植相关因子
S.mutans首先须稳定附着在牙面,才能发挥致病作用,而这一过程依赖多种关键因子参与。
•表面黏附蛋白(如 AgI/II, P1)
介导细菌与牙釉质获得性膜(pellicle)的初始结合。
•葡聚糖结合蛋白(Gbps)
促进细菌与已形成的多糖基质结合,增强细胞间聚集。
•葡糖基转移酶(Gtfs:gtfB、gtfC、gtfD)
是关键毒力因子
功能分化:
GtfC:结合牙面并启动葡聚糖合成;
GtfB:生成不溶性葡聚糖,促进菌体聚集;
GtfD:生成可溶性葡聚糖(作为底物/引物)。
在葡糖基转移酶的作用下,变异链球菌将蔗糖转化为葡聚糖,从而在细菌周围形成富含葡聚糖的胞外多糖基质(EPS),并以此为支架逐步构建起结构复杂、具有三维空间组织的生物膜。
2
生物膜—最关键的毒力因素
生物膜是变异链球菌最关键的毒力系统,其形成依赖于葡糖基转移酶(GtfB、GtfC、GtfD)催化蔗糖生成葡聚糖,并进一步构建胞外多糖基质(EPS),这一过程受vicRK、liaSR、brpA等基因调控。
从机制上看,当摄入蔗糖后,Gtf酶可将其转化为具有高度黏性的葡聚糖,相当于为细菌提供“胶水”,不仅使细菌牢固附着于牙面,还促进细菌之间的聚集,最终形成以细菌、胞外多糖和食物残渣为主要成分的牙菌斑生物膜。
生物膜形成周期
编辑
Fitri DK,et al.Front Oral Health.2025
•生物膜能提高细菌耐受性并形成局部酸性环境
生物膜结构具有重要的致病意义:一方面增强对机械清除的抵抗,使其不易被刷牙或唾液冲刷去除;另一方面限制抗菌物质的渗透,提高细菌耐受性;更关键的是,它能够滞留细菌代谢产生的酸,形成局部低pH微环境,从而促进牙釉质脱矿并推动龋齿发生。
3
产酸能力
•变异链球菌能够代谢糖并产生乳酸
变异链球菌具有高度活跃的糖代谢能力,其糖酵解通量显著高于许多口腔共生菌,能够迅速摄取并分解多种可发酵碳水化合物(尤其是蔗糖、葡萄糖和果糖)。
在这一过程中,细菌通过乳酸脱氢酶的催化作用,将糖代谢终产物丙酮酸进一步还原为乳酸,并持续向胞外释放。由于这一代谢过程发生迅速且效率极高,菌斑局部环境中的酸性物质会在短时间内大量积累,使pH值迅速下降,常可降至5.5以下这一牙釉质脱矿的临界阈值。
•pH降低使牙釉质发生脱矿,并逐渐发展为龋齿
当pH降低至该水平时,牙釉质中的羟基磷灰石晶体开始发生溶解,钙离子和磷酸根逐渐流失,导致牙体硬组织出现脱矿变化。若这一过程反复发生且未被唾液缓冲或再矿化机制有效逆转,便会逐步发展为早期白垩斑,最终形成不可逆的龋损。
变异链球菌导致龋齿形成的生化机制
编辑
doi: 10.1007/s13205-025-04227-3.
4
耐酸能力
变异链球菌不仅具有较强的产酸能力,还具备出色的耐酸性,这是其能够在致龋环境中持续生存并占据优势的关键。
•变异链球菌通过机制避免细胞内环境酸化,并占据主导生态位
首先,在酸性条件下,变异链球菌细胞膜上的 F₁F₀-ATPase 可主动将胞内过量的H⁺泵出细胞外,从而维持相对稳定的胞内pH,避免细胞内环境酸化对代谢过程的抑制。
其次,S. mutans能够通过调节细胞膜脂质组成,改变脂肪酸比例,使细胞膜通透性降低,从而减少外界酸性物质对细胞内部的侵入和损伤。
此外,在低pH应激条件下,该菌还可上调一系列应激蛋白(如GroEL等分子伴侣蛋白)的表达,这些蛋白有助于维持关键酶和结构蛋白的正确折叠与功能稳定,保障细胞在酸性环境中的正常生理活动。
正是依赖上述多重机制,变异链球菌能够在其他细菌难以耐受的低pH环境中持续存活并不断繁殖,从而在牙菌斑生态系统中逐渐占据主导地位。
5
细菌竞争与“生态操控”
变异链球菌在口腔生物膜中不仅依赖自身生长优势,还通过多种机制主动调控微生态环境,从而在菌群竞争中占据主导地位。
•能够产生细菌素抑制其他细菌
一方面,它能够产生细菌素,可直接抑制或杀灭周围竞争性细菌,减少资源竞争。另一方面,其通过群体感应系统感知自身密度变化,并协调调控相关毒力因子的表达,例如增强细菌素的产生、生物膜的形成以及应激反应,从而提高整体群体的适应性和竞争力。
此外,变异链球菌还通过其强大的产酸能力改变局部微环境,使菌斑pH持续降低。这样的酸性环境不利于多数口腔共生菌(通常为中性偏好菌)的生存,却有利于自身及其他耐酸菌的增殖,从而进一步强化其生态优势。
通过“直接抑制对手”(分泌细菌素)与“间接改变环境”(降低pH)这两种策略,变异链球菌不仅能够在复杂的口腔微生物群落中稳定定植,还能逐步排挤有益菌群,推动菌群向致龋方向演替。
龋齿是怎么一步步发生的?
(1)初始定植阶段
首先,在初始定植阶段,婴幼儿多通过母体传播获得变异链球菌(S. mutans),此外也可能通过共享餐具或共同食物等途径在日常接触中发生水平传播。
这些细菌借助表面黏附蛋白附着于牙面形成的获得性膜上,虽然此时尚未直接致病,但已在口腔内建立起“种子菌群”,为后续发展奠定基础。
(2)蔗糖驱动的生物膜建立
随着饮食中蔗糖的摄入,进入生物膜建立阶段。变异链球菌分泌葡糖基转移酶(Gtfs),将蔗糖转化为葡聚糖并形成胞外多糖基质(EPS),这种具有黏性的基质如同“胶水”,将细菌彼此黏连并牢固固定在牙面上,逐渐形成结构致密的牙菌斑生物膜。
(3)酸性微环境形成
在此基础上,若频繁摄入碳水化合物,细菌通过高效发酵迅速产生乳酸,导致局部酸性物质积累。同时,EPS基质会限制酸的扩散,使其滞留于生物膜内部,致使局部pH持续下降,甚至低于5.5这一牙釉质脱矿的临界值,从而形成有利于脱矿的酸性微环境。
(4)菌群“变坏”(生态失衡)
当环境酸化到一定程度后,进入关键的生态选择阶段。原本占优势的酸敏感菌逐渐被抑制甚至淘汰,而耐酸性更强的细菌,如变异链球菌和乳杆菌(Lactobacillus),则得以富集并占据主导地位,使菌群结构由“健康型”转变为“致龋型”。
(5)牙体脱矿,开始“溶解”
牙齿发生“溶解”的本质是牙釉质的脱矿过程。牙釉质的主要无机成分为羟基磷灰石,其化学式为 Ca₁₀(PO₄)₆(OH)₂。在酸性环境中,尤其当局部pH降低至临界值以下时,这种晶体结构会逐渐被破坏并发生溶解,导致钙离子和磷酸根从牙釉质中不断流失。
在临床表现上,这一过程的早期通常表现为白垩斑,即牙面出现失去光泽的白色不透明区域,提示釉质已发生初步脱矿但表面尚未破坏。如果酸性环境持续存在且未得到有效干预,脱矿将进一步加重,最终导致釉质表面结构塌陷,形成实质性缺损,逐渐发展为龋洞。
(6)生物膜成熟与龋洞形成
随着时间推移,生物膜逐渐成熟,其结构更加复杂致密,对机械清除和抗菌剂的抵抗能力显著增强。同时,在反复进食与代谢过程中,菌斑pH呈现周期性波动,但整体维持在偏低水平,使脱矿过程反复发生。
编辑
并且牙釉质结构被不断破坏,最终出现实质性缺损,进而暴露下方的牙本质,并逐渐形成可见的龋洞。如果病变进一步发展且未得到及时处理,细菌及其代谢产物可侵入牙髓组织,引发牙髓感染,临床上常表现为明显的牙痛等症状。
小编总结
变异链球菌(Streptococcus mutans)致龋的核心在于其多种因子的协同作用:
1.依赖黏附蛋白与葡糖基转移酶(Gtfs)合成胞外多糖,增强对牙面的黏附并促进致密生物膜形成;
2.具备强大的产酸能力,可快速发酵碳水生成乳酸;
3.具有良好的耐酸性,能够在低pH环境中持续生存与代谢;
4.还可通过细菌素及群体感应机制抑制竞争菌。
在这些因素共同作用下,菌斑内酸性持续累积,导致牙釉质羟基磷灰石脱矿,最终引发并推动龋齿的发生与进展。
!
哪些人更容易S.mutans过高?
①高频摄入高糖人群
特点:经常吃甜食、含糖饮料(如零食、奶茶、碳酸饮料)。
机制:提供持续底物 → S. mutans通过糖酵解产生乳酸,竞争优势增强。
②夜间进食/睡前不清洁人群
③口腔清洁不佳人群
刷牙或口腔清洁做的不到位,生物膜未被破坏。牙面形成“封闭微环境”,有利于S.mutans定植和繁殖。
④正畸患者(戴牙套人群)
特点:托槽、弓丝增加滞留位点。
机制:更易形成局部生物膜、清洁难度显著增加。
⑤唾液功能低下人群
常见人群:
-老年人;
-服用抗胆碱药、抗抑郁药者;
放疗患者。
机制:
-唾液减少 → 缓冲能力下降;
-再矿化能力降低;
-抗菌成分减少。
一项研究以香港12–15岁青少年为对象,探讨脂肪状态、唾液理化特性及炎症生物标志物与两种主要致龋菌(变异链球菌和远源链球菌)之间的关系。结果显示,超重/肥胖及中心性肥胖与唾液中变异链球菌丰度显著升高相关,同时伴随唾液流速降低和抗菌蛋白sPLA2-IIA水平下降,但对远源链球菌无显著影响。研究提示肥胖可能通过影响唾液分泌与免疫防御机制,进而增加龋病风险相关菌群。
⑥长期口呼吸人群
机制:口腔干燥 → 局部微环境改变,有利于S.mutans富集。
⑦口腔环境与牙体结构异常者
如:深窝沟、牙列不齐,有利于S.mutans黏附与生物膜形成。
或是已有龋齿或修复体人群,因为粗糙表面增加附着位点,易形成局部“菌库”。
⑧微生态失衡人群
正常菌群减少,失去对S.mutans的竞争抑制。
⑨行为与生活方式相关人群
吸烟者:改变口腔菌群结构;
压力大/作息紊乱人群:影响免疫与唾液分泌;
不定期口腔检查者:无法早期干预。
变异链球菌(Streptococcus mutans)是导致龋齿的主要致病细菌。然而,越来越多的动物实验和临床发现表明,变异链球菌的特征并不仅限于对牙齿组织的损害。
变异链球菌不仅能够在局部诱发炎症反应,还可能在特定条件下进入血液循环,并进一步对全身多个器官和系统产生潜在影响和损害,例如可作用于血管内皮,并与IgA肾病、炎症性肠病、非酒精性脂肪性肝炎以及肿瘤等多种疾病过程存在相关性。
变异链球菌引起的多器官损伤
编辑
Fang Y,et al.Front Microbiol.2024
1
S.mutans的促炎机制
变异链球菌表面蛋白质抗原(PA)有潜力刺激TNF-α、IL-1β和IL-6的产生。
•TNF-α和IL-1β的诱导
在巨噬细胞中,S.mutans通过激活信号通路ERK/p38/JNK和NF-κB,分别通过TLR2(Toll样受体2)和TLR4(Toll样受体4)来诱导TNF-α和IL-1β的产生。
NF-κB激活转录反应,促进前IL-1β的合成,第二条信号通路通过炎症小体激活半天冬酶-1依赖的IL-1β成熟和分泌。
TNF-α可启动细胞因子级联反应,增强血管通透性并招募巨噬细胞和中性粒细胞至感染部位。IL-1β由激活的单核吞噬细胞产生,依赖先天免疫介导炎症反应,具有促进吞噬细胞活化、抗体生成及T细胞极化等多种生物学作用。
•通过产生IL-6调控炎症
IL-6及其可溶性受体是调控中性粒细胞和单核细胞募集的关键介质。研究表明,葡糖基转移酶(GTFs)在缺乏葡萄糖时虽不促进感染,但可调节炎症反应;在急性炎症中,GTFs是诱导IL-6的重要调控蛋白,并可能在全身感染过程中于脾脏及周围病灶刺激IL-6产生。
临床研究发现,心内膜炎各阶段血清IL-6水平均显著升高,而其他细胞因子变化不明显,提示持续的IL-6激活可能参与心肌损伤。此外,作为革兰阳性菌,变异链球菌可通过其胶原结合黏附分子抑制经典补体途径。
2
S.mutans在心血管疾病中的作用
变异链球菌进入血液后可对多器官和系统造成损害,其中对心血管系统的致病机制研究最为明确。其胶原结合蛋白(CBP)可与I型胶原结合,损伤血管并诱发脑出血、感染性心内膜炎等心血管疾病。
在多项临床和动物研究中,变异链球菌常被检出于心脏瓣膜和动脉粥样硬化斑块中,其在菌血症及血管损伤中的作用已得到证实。
•可能加速诱导动脉粥样硬化
动脉粥样硬化(AS)是一种在中动脉或大动脉壁形成脂质斑片状沉积的疾病,导致血流减少或受阻。变异链球菌通过对血管内皮细胞的损伤作用加速了AS的诱导,这在受损的内皮细胞中更为明显。
编辑
目前认为,人主动脉内皮细胞(HAEC)感染变异链球菌后显著上调细胞内TLR2和NOD2(核苷酸结合寡聚结构域蛋白)表达,导致心血管疾病相关的促炎细胞因子(IL-6、IL-8、MCP-1)产生增加。
体外研究发现,在S. mutans感染后,HAECs中细胞DMBT1(在恶性脑瘤1中缺失,被认为是肿瘤抑制基因)表达上调。变异链球菌对DMBT1敲低HAEC更具侵袭性,导致细胞因子产生增加。
•感染性心内膜炎
当S. mutans到达受损的心内皮后,可与暴露的胶原蛋白结合,活化血小板亦通过vWF参与黏附。可能通过与纤维蛋白原相互作用促进微生物聚集,从而诱发感染性心内膜炎(IE)。
•S.mutans还有概率增加脑微出血
小鼠模型表明,变异链球菌与脑出血加重相关,该情况为感染性心内膜炎的并发症之一,发生率约为10%。横断面研究显示其可增加脑微出血(CMBs),后续纵向研究进一步证实其与高血压性脑出血及深部CMBs相关,这两者是穿支动脉粥样硬化的主要出血表现。
编辑
影响因子:7.19
其可能机制包括:随年龄增长血脑屏障通透性升高、内皮完整性下降;慢性高血压导致小血管结构改变、血脑屏障破坏及I型胶原沉积。
上述变化释放血管相关因子,促进变异链球菌与暴露的胶原结合并黏附于小穿支动脉。随后中性粒细胞浸润及炎症反应增强,增加血脑屏障通透性并释放髓过氧化物酶MPO-16和基质金属蛋白酶MMP-9,加重内皮损伤。
此外,细菌表面负电荷可抑制血小板与胶原的结合,促进局部出血;在衰老和高血压背景下,深部血管损伤进一步加剧,最终导致脑出血和出血性卒中。
3
S.mutans与炎症性肠病
结肠炎的加重可能是由肝脏的变异链球菌感染引起的,变形链球菌感染期间肝脏释放的IFN-γ是各种炎症级联反应的第一步。
编辑
•变异链球菌感染促进炎症细胞因子释放
现有数据显示,促炎细胞因子(TNF-α、IL-1β和IL-6)以及免疫抑制性IL-10缺乏是肠道炎症的标志物。IL-6是溃疡性结肠炎患者炎症区域的主要细胞因子,其浓度与内镜下疾病严重程度评分相关。
4
S.mutans与IgA肾病
研究已证实扁桃体免疫与肾小球肾炎密切相关,部分病原体可通过影响扁桃体免疫参与IgA肾病的发生。感染等粘膜变化可以激活先天免疫系统,加剧现有的IgA,并促进血尿等疾病表现。
•S.mutans可诱导肾小球炎症
较高浓度的IV型胶原可促进变异链球菌聚集。研究表明,该菌可诱导兔肾小球和肾小管严重炎症,并在大鼠中引发IgA肾病样肾小球肾炎。Cnm阳性菌株与蛋白尿升高及IgA肾病加重相关,但Cnm蛋白本身对肾脏无直接损伤。
编辑
影响因子:3.998
其在黏膜组织中与IgA的免疫反应可能导致IgA1糖基化缺陷,而该缺陷是IgA肾病的重要发病机制。
5
S.mutans与非酒精性脂肪肝炎
“二次打击理论”被广泛认为是非酒精性脂肪肝炎(NASH)发生的机制:首先是因为吃得过多、代谢紊乱,出现胰岛素抵抗,脂肪在肝脏里堆积,形成“脂肪肝”;然后在这个基础上,氧化应激、脂质过氧化和线粒体功能受损等因素进一步加重损伤,促使肝脏发生炎症和纤维化,最终发展为NASH。
•携带并表达Cnm蛋白的S.mutans会加重肝损伤
与Cnm+ /PA-变异株S.mutans株相比,Cnm+ /PA +株在小鼠中表现出较高的致病性,导致NASH加重。Cnm帮助变异链球菌在肝细胞上附着,避免脂肪酸积累。Cnm和蛋白质抗原(PA)分别可能促进S. mutans细胞与肝细胞的结合,分别在无脂肪酸和结合后。
注:Cnm是一种“胶原结合蛋白”,能让细菌黏附在人体的胶原组织上(比如血管、心脏瓣膜等)。
在细菌细胞表面表达PA和Cnm的S. mutan会定位于肝脏并附着于肝细胞上,导致与氧化应激相关的炎症细胞因子增加,如IFN-γ和金属硫黄素。这导致肝细胞再次受损,加重NASH。越来越多的证据支持IV型胶原蛋白与Cnm+ S.mutans之间的临床相互作用。
6
S.mutans与肿瘤相关
变异链球菌感染会增加肿瘤侵袭性,并与疾病控制不佳有关。
•变异链球菌增加IL-6促进口腔癌的发展
在口腔鳞状细胞癌小鼠模型中,变异链球菌通过增加IL-6的产生促进口腔癌的发展和进展。变异链球菌还能够通过上调IL-8、降低血管内皮钙粘蛋白表达和增强细胞间粘附分子,诱导血管炎症并破坏血管屏障,从而促进肿瘤细胞渗出并向内皮迁移。
•S.mutans可能通过血栓形成促进肿瘤转移
血管内皮受损导致脑出血、感染性心内膜炎和动脉粥样硬化。变异链球菌可诱导白介素上调,这与其血管损伤共同可能导致原发肿瘤的血管转移。
编辑
变异链球菌在龋齿的发生和发展中具有关键作用,因此,制定有效策略以抑制变异链球菌生物膜形成,对于预防龋齿和促进口腔健康至关重要。
传统预防龋齿的方法
•饮食控制
减少高频摄入糖(尤其蔗糖);
避免“少量多次”吃甜食(比总量更重要);
餐后及时清洁口腔。
•正确口腔卫生习惯
每天刷牙≥2次(含氟牙膏);
使用牙线或间隙刷;
睡前刷牙尤为关键。
•定期口腔检查
龋齿是一个可逆→不可逆过程:
早期:白垩斑(脱矿)—可逆;
中期:釉质破坏;
晚期:牙本质龋—不可逆。
检查频率
普通人:6–12个月;
高风险人群(高糖饮食/正畸/儿童):3–6个月。
•窝沟封闭(儿童关键措施)
磨牙窝沟深,易滞留食物和菌斑;使用封闭剂封闭磨牙窝沟,有助于阻止菌斑滞留。
•专业洁治
包括:超声洁治、手工刮治。
作用:去除牙石、成熟菌斑。
除了传统的治疗方法外,现在已开发出一系列创新的抗菌膜策略,针对去除生物膜展现出有前景的应用。包括抗菌肽、益生菌、纳米颗粒、先进的物理方法(如非热等离子体和光动力疗法)以及噬菌体疗法。
抗变异链球菌生物膜策略
编辑
Gao Z,et al.Microbiol Res.2023
1
抗菌肽
长期广泛使用抗菌剂(如氯己定和三氯生)预防和治疗龋齿,可能促进细菌耐药性(AMR)的产生并扰乱口腔微生态。同时,牙齿生物膜通过其细胞外多糖(EPS)基质为细菌提供保护,限制抗菌剂渗透,削弱治疗效果。
•抗菌肽能够有效减少生物膜,并不易产生耐药性
近年来,抗菌肽(AMPs)被视为替代传统抗生素的潜在策略。AMPs是来源广泛的小分子碱性多肽,具有广谱杀菌活性和抑制生物膜形成的能力。其主要通过破坏细胞膜、形成跨膜孔道、干扰细胞内分子以及抑制细胞壁、核酸和蛋白质合成发挥作用,同时还能抑制细菌初始黏附和调控相关基因表达。
由于作用机制多样,细菌较难产生耐药性。研究表明,人β-防御素-3(HBD3)对多物种口腔生物膜的抗菌效果优于氢氧化钙和氯己定,并显著减少生物膜量。此外,催化素、防御素和组氨素等天然抗菌肽也被证实具有抗菌和抗生物膜作用。
不过尽管AMPs具有优势,其临床应用仍受限于稳定性差(易被蛋白酶降解)和生产成本高。为此,研究正致力于开发合成肽及其工程改造以提升稳定性和应用性。
2
益生菌
益生菌(如乳酸杆菌、双歧杆菌和枯草芽胞杆菌(Bacillus subtilis))传统用于多种全身疾病的防治,但同时研究也发现其可通过竞争黏附位点或与浮游变异链球菌共聚抑制定植,并通过产生有机酸、过氧化氢、细菌素和表面活性物质发挥抗菌与抗生物膜作用。
•植物乳杆菌等益生菌能抑制生物膜形成并降低相关致病蛋白表达
研究表明,益生菌及其衍生形式(如合成生物制剂、后生物和副益生菌)在生物膜相关口腔疾病中具有良好应用前景。例如,特定菌株可显著抑制S.mutans生物膜形成并下调gtf、ftf、brpA及群体感应相关基因表达;Lactobacillus plantarum在动物模型中表现出优于氯己定的抗菌效果,并可调节口腔菌群结构。
合成组合(如胶原肽联合L. rhamnosus)可破坏生物膜结构并降低胞外多糖生成;细菌裂解物则通过抑制MAPK和NF-κB通路发挥抗炎及抗生物膜作用,但对成熟生物膜清除有限。此外,来源于乳酸杆菌的脂磷壁酸可干扰蔗糖代谢并抑制多菌种生物膜形成。除乳酸杆菌外,枯草芽胞杆菌通过高效代谢糖醇增强对S.mutans的抑制作用。
总体而言,益生菌干预可通过调节口腔微生态及饮食相关代谢过程,降低龋病风险。
3
噬菌体疗法
噬菌体是感染细菌并破坏其代谢、最终导致细胞裂解的病毒。其具有高特异性、对共生菌影响小、天然低毒且不依赖耐药机制,因此被视为对抗耐药病原体的有前景策略。
噬菌体还可通过编码酶降解生物膜细胞外多糖、破坏细胞外基质,从而抑制生物膜形成,被认为是干预变异链球菌生物膜的重要替代方法之一。
•一些噬菌体可抑制变异链球菌生长及生物膜形成
近期研究发现多种针对变异链球菌的新型噬菌体具有良好的抗生物膜潜力。例如,从人类唾液中分离的ɸAPCM01可抑制其生长、生物膜代谢活性及活菌数量。通过基因工程使变异链球菌表达噬菌体T4 RNA连接酶1,也可显著降低生物膜量并破坏胞外多糖结构。
另一种口腔来源噬菌体SMHBZ8因强溶菌活性,在体外及小鼠模型中均能预防龋损形成。此外,溶菌性噬菌体在抑制生物膜相关基因表达方面优于细菌素,且二者联合应用并未优于单独使用。
4
纳米粒子
纳米颗粒因其固有抗菌特性,已成为对抗细菌感染和耐药性的有力工具,并被广泛应用于口腔生物膜治疗与药物递送。
•许多金属纳米粒子具有抗菌和抗生物膜作用
研究表明,多种金属及金属氧化物纳米颗粒(如金、银、铜、钛、铁等)均具有抗菌和抗生物膜作用,其机制包括破坏细胞壁、抑制胞外多糖或群体感应、产生活性氧(ROS)以及干扰DNA和蛋白质功能。
例如,银纳米颗粒(AgNPs)在龋病及健康人群的菌斑样本中均表现出显著抗菌效果,且粒径越小(如5.2 nm)活性越强,与性别或龋齿状态无显著相关性。
近年来,通过与其他材料复合以增强效果成为趋势,如由海藻酸钠/高岭土/AgNPs构建的纳米复合材料可完全抑制S. mutans生物膜内细菌活性,其作用主要源于AgNPs增加膜通透性并破坏细胞结构。
需要指出的是,尽管纳米颗粒在龋齿局部治疗中取得进展,其在口服生物膜治疗中的安全性仍是关键问题。临床应用前需充分评估其潜在毒性,包括体外细胞毒性和体内动物实验,以确保纳米技术疗法的安全性。
5
非热等离子体
传统机械清除虽可去除大部分牙菌斑和微生物,但口腔微生态可迅速恢复并促进细菌再生。非热等离子体(NTP)为抑制变异链球菌生物膜提供了新的解决方案。
•非热等离子体具有去除牙菌斑生物膜的前景
NTP由带电粒子、自由基及活性氧等活性成分组成,具有显著杀菌能力,可通过不同电压作用于气体产生。其特点是电子温度高(约10⁴ K)而离子温度接近室温,使整体温度较低。作为一种物理方法,NTP能够有效破坏并穿透生物膜,在牙菌斑去除中展现出良好应用效果。
NTP可显著改变生物膜代谢,增强TCA循环和整体代谢活性,使变异链球菌对抗生素和氧化应激更敏感;在大鼠模型中亦降低了龋病发生率和严重程度,但长期处理在临床上可行性有限。
6
光动力治疗
抗菌光动力疗法(PDT)因在治疗耐药感染和清除生物膜方面的潜力,成为有前景的生物膜干预手段。
其机制为光敏剂(如卟啉、邻苯二氮衍生物)在特定波长光照下转化为激发三重态,通过能量传递产生活性氧(ROS),进而氧化损伤蛋白质、脂质和多糖等,导致微生物死亡。
•光动力疗法可以减少致龋菌并降低耐药性风险
PDT疗效取决于光照条件、光敏剂类型及氧气供应。其多靶点作用降低了耐药性发生风险,支持其作为传统抗生素的替代方案。此外,PDT具备高效、无创、组织选择性强及环境友好等优势,在口腔医学中的应用前景广阔。
多项研究表明,光动力疗法(PDT)在体内去除生物膜方面具有显著潜力。经MPP-Ce6介导的PDT治疗后,致龋菌数量降至约10%,龋损数量和严重程度均明显降低。此外,快速交联水凝胶可在牙面形成涂层,按需释放ROS以清除生物膜,同时实现牙齿美白且不显著损伤牙釉质和牙龈组织。
主要参考文献
Fang Y, Chen X, Chu CH, Yu OY, He J, Li M. Roles of Streptococcus mutans in human health: beyond dental caries. Front Microbiol. 2024 Dec 19;15:1503657.
Gao Z, Chen X, Wang C, Song J, Xu J, Liu X, Qian Y, Suo H. New strategies and mechanisms for targeting Streptococcus mutans biofilm formation to prevent dental caries: A review. Microbiol Res. 2023 Oct 14;278:127526.
Lemos JA, Palmer SR, Zeng L, Wen ZT, Kajfasz JK, Freires IA, Abranches J, Brady LJ. The Biology of Streptococcus mutans. Microbiol Spectr. 2019 Jan;7(1):10.1128/microbiolspec.gpp3-0051-2018.
Thayumanavan T, Harish BS, Subashkumar R, Shanmugapriya K, Karthik V. Streptococcus mutans biofilms in the establishment of dental caries: a review. 3 Biotech. 2025 Mar;15(3):62.
Fitri DK, Tuygunov N, Wan Harun WHA, Purwasena IA, Cahyanto A, Zakaria MN. Key virulence genes associated with Streptococcus mutans biofilm formation: a systematic review. Front Oral Health. 2025 Aug 26;6:1654428.
Bowen WH, Koo H. Biology of Streptococcus mutans-derived glucosyltransferases: role in extracellular matrix formation of cariogenic biofilms. Caries Res. 2011;45(1):69-86.
Yu L, Hong Y, Maishi N, Matsuda AY, Hida Y, Hasebe A, Kitagawa Y, Hida K. Oral bacterium Streptococcus mutans promotes tumor metastasis through thrombosis formation. Cancer Sci. 2024 Feb;115(2):648-659.
Krzyściak W, Jurczak A, Kościelniak D, Bystrowska B, Skalniak A. The virulence of Streptococcus mutans and the ability to form biofilms. Eur J Clin Microbiol Infect Dis. 2014 Apr;33(4):499-515.
Wasfi R, Abd El-Rahman OA, Zafer MM, Ashour HM. Probiotic Lactobacillus sp. inhibit growth, biofilm formation and gene expression of caries-inducing Streptococcus mutans. J Cell Mol Med. 2018 Mar;22(3):1972-1983.
Deng Q, Wong HM, Peng S. Effect of adiposity status on salivary Streptococcus mutans and Streptococcus sobrinus. Oral Dis. 2025 Oct;31(10):2943-2953.
Lu C, Zhang S, Hong G. Comparative effectiveness of probiotics, prebiotics, synbiotics, and postbiotics in preventing dental caries: a meta-analysis from an oral microbiota modulation perspective. BMC Oral Health. 2026 Jan 27;26(1):342.
谷禾健康
维生素K是一种对身体功能至关重要的脂溶性维生素。它们被认为是人类产生多种参与凝血和钙稳态蛋白质的重要辅因子,所以又叫凝血维生素。
天然存在的维生素K主要分为两类:维生素K1(叶绿醌)和维生素K2(甲萘醌)。尽管同属维生素K,但它们之间有不少差异。
维生素K1主要存在于绿色蔬果中,K2存在于发酵食品或由肠道细菌产生。微生物K2通常半衰期更长,更容易在血清中积累,且其在肝外的血液分布范围更广,生物利用度更高。
并且维生素K2除了常规的凝血作用外,研究发现其可能还有益于心血管健康、改善骨质疏松、对肾病有帮助、或预防关节炎、改善血糖控制,并可调节免疫与神经认知,甚至具一定抗癌潜力。
维生素K2(主要为MK-7和MK-4)通过γ-羧基化(γ-carboxylation)机制激活两类关键蛋白:骨钙蛋白(Osteocalcin, OCN)和基质Gla蛋白(Matrix Gla-protein, MGP)。前者驱动钙沉积于骨基质,提高钙离子的结合力,使活化的OCN能够有效捕获血液中的钙离子并将其整合到骨矿物质中;后者则阻止钙在血管和软组织中的病理性沉积,减少血管异常钙沉积、降低心脑血管健康风险。
值得注意的是,维生素K2的内源性合成与肠道菌群状态密切相关,肠道益生菌(如乳酸菌、双歧杆菌,芽孢杆菌属等)是K2的主要内源合成者,其健康状态直接影响K2的体内浓度、肠道对外源K2的吸收利用效率,以及钙、维生素D等其他营养物质的生物利用度。抗生素使用、高脂高糖饮食、肠道炎症等因素导致的菌群失调会显著降低益生菌数量,进而导致K2合成下降,使得即使补充充足的钙和维生素D,其骨矿化效率仍然有限。
本文旨在从分子生物学、营养代谢和菌群微生态的多维度,系统阐述维生素K2的生理机制、吸收利用和代谢过程,阐明肠道菌群与K2的协同作用机制,并进一步介绍了从补给一饮食一菌群生态位层面的综合改善干预预防措施。
什么是维生素K?
维生素K(Vitamin K)又叫“凝血维生素”,因为它传统上最常与凝血相关:维生素K参与凝血相关蛋白的成熟激活(羧化),缺乏时会影响凝血功能。维生素K是一类脂溶性的小分子营养素,其最早于1929年由丹麦化学家达姆从动物肝和麻子油中发现并提取。
↘ K1、K2天然存在且为脂溶性
维生素K包括K1(叶绿醌)、K2(甲基萘醌)、K3(甲萘醌)、K4(甲萘氢醌)等几种形式,其中K1、K2是天然存在的,属于脂溶性维生素;而K3、K4是通过人工合成的。
这四种维生素K的化学性质都较稳定,能耐酸、耐热,正常烹调中只有很少损失,但对光敏感,也易被碱和紫外线分解。
虽然维生素K1和维生素K2同属于维生素K家族,并且都属于天然存在的营养成分,但它们在很多方面仍然直接存在着差异;这些不同并不只是来源层面的区别,而是会进一步体现在它们在体内的分布、可利用性以及由此带来的生理功能表现上。
注:本文这里主要介绍维生素K1和K2。
▸ 来源差异
↘ K1主要存在于绿色蔬果中
维生素K1主要存在于绿叶蔬菜、植物油和部分水果中(菠菜、卷心菜、羽衣甘蓝、牛油果),是饮食中维生素K的主要来源。
↘ K2存在于发酵食品或由肠道细菌产生
维生素K2存在于动物性和发酵食品(纳豆、奶酪、酸菜)中,或由人体肠道细菌产生。
维生素K1和K2的膳食来源
doi: 10.3390/ijms20040896.
▸ 结构差异
维生素K1含有一个由4个异戊二烯基单元构成的植酸侧链。
而维生素K2含有一个不饱和脂肪族侧链,并带有可变数量的异戊二烯基单元;丙烯基单元的数量对应不同的甲萘醌类型,包括短链的甲萘醌-4(MK-4)以及长链的MK-7、MK-8和MK-9。
其中,“n”越大代表侧链越长,从而显著影响其理化性质并进一步影响体内行为(如吸收、分布与停留时间)。
维生素K家族的化学结构
Zhang T,et al.Foods.2024
▸ 生物利用是关键差异
↘ K1主要分布在肝脏、K2分布更广泛
维生素K1和K2均为脂溶性,可与膳食脂肪和胆汁吸收。但它们在组织中的分布有所不同。肝脏、心脏和胰腺中维生素K1水平较高,但大脑、肾脏和肺部的浓度较低。
相较之下,维生素K2可存在于所有组织,但在肝脏、心脏和肺部的浓度较低。其长链衍生物可重新分布至循环系统,并用于肝外组织,如骨骼和血管。MK-4在大脑、肾脏和胰腺中的水平较高或接近K1,且其总体水平高于K1。
↘ 维生素K2半衰期更长,生物利用度更高
微生物K2(尤其是长链MK-7/MK-9)通常半衰期更长。一项比较维生素K1与MK-7的研究显示,MK-7半衰期可达68小时,而K1仅为1–2小时。
因此,维生素K2更容易在血清中积累,且其在肝外的血液分布范围更广,能更好地到达骨骼和血管等组织。相比之下,维生素K1从循环中清除更快,更易在肝脏中积累,并通过尿液和胆汁排出。
维生素K的生物利用度和生物分布
doi: 10.3390/ijms20040896.
研究发现,MK-7吸收效率和生物利用度最高。无论是摄入蔬菜来源的维生素K1,还是摄入富含K2的食物来源MK-7,二者在摄入后2小时内均可迅速吸收;但餐后血清中MK-7浓度约为K1的10倍。
同时,K1的空腹血浆浓度在个体间差异显著,且其吸收低于MK-4以及更长链的K2(如MK-8、MK-9)。长链维生素K2(尤其MK-7与MK-9)在循环中的半衰期更长,因此在循环中可被肝外组织更长时间利用。
不过,并非所有维生素K2都同样高效:MK-4的生物利用度并不一定对应给药后血清浓度升高;而MK-7给药可使血清MK-7水平在数天内持续升高,从而更好地反映并促进体内维生素K水平。
▸ 功能意义
两者均是维生素K依赖蛋白(凝血因子、骨钙素、基质Gla蛋白)γ羧化的辅因子。
K1:以肝脏凝血作用为主;
K2(尤其MK-7):更有效地激活肝外蛋白。现有证据提示其对骨骼健康和血管钙化可能有益,并被用于研究其在心血管、代谢及炎症相关疾病中的作用。
维生素K2如此重要,是因为它在人体内发挥多种关键作用,其中最为人熟知的是它作为维生素K依赖性凝血因子的激活辅因子。
近几十年的研究显示,维生素K2可能通过参与组织矿化、炎症、氧化以及年龄相关疾病过程发挥保护作用,从而为其在未来临床实践中的应用提供新的方向。
目前,维生素K2在心血管疾病、骨骼发育与骨折、慢性肾病以及某些癌症中的作用已较为明确;同时,越来越多的证据提示其在肝病、免疫功能、神经系统疾病和肥胖等方面也可能具有更广泛的作用。
对于凝血功能至关重要
维生素K是四种凝血蛋白(凝血酶原、转变加速因子、抗血友病因子和司徒因子)在肝脏内合成必不可少的物质,对γ-羧基谷氨酸的合成具有辅助作用。如果缺乏维生素K,则肝脏合成的上述四种凝血因子均为异常蛋白质分子,催化凝血作用的能力将大大下降。
维生素K促凝血和抗凝因子
Mladěnka P,et al.Nutr Rev.2022
维生素K2对心血管疾病有益
血管钙化是一个主动过程,推动心血管疾病发生,是全球主要死因之一。维生素K2依赖的蛋白质能够激活保护机制,抑制血管钙化发展。
↘ 维生素K2可以降低血管钙化风险
以MK-7形式存在的维生素K2,在健康与患病人群队列多项试验中表现出对钙化形成的长期保护作用;多项研究亦提示心血管疾病总体发生风险降低。甚至在健康人群补充后,也观察到动脉硬化的倒退与血管弹性的改善。
维生素K2的作用机制
编辑
doi: 10.1136/openhrt-2021-001715.
这些蛋白通过维生素依赖性羧化被激活。动脉粥样硬化斑块中识别的激活基质GLa蛋白可能抑制钙沉淀与软组织钙化。在一项前瞻性人群研究(LOE-A)中,纳入4807名基线无心肌梗死受试者并随访7年:维生素K2摄入量最高组相较最低组,冠心病风险显著降低。
编辑
影响因子:4.281
有趣的是,在对维生素K1和K2异构体进行全面评估的研究中,只有K2与心血管获益相关,K1则无。此外,维生素K2在心血管疾病中的作用范围较广。
目前全球仍有多项针对心血管患者补充维生素K2的大型临床研究在进行,结果将进一步完善其在该领域的证据体系。
维生素K2能改善骨质疏松症
维生素K2具有促进骨形成的作用,临床与实验研究均证实其对抗骨质疏松具有明确效果。在骨髓间充质干细胞中,维生素K2可促进骨生成的分化。
↘ 维生素K2支持骨分化,有助于抗骨质疏松
一项系统性综述(证据水平I[LOE = A])显示,维生素K2在日本患者中对预防椎骨骨折的比例为60%,对髋部骨折为77%,对非椎骨骨折为81%。其效果与传统双膦酸盐疗法相当。
另一项研究(LOE-B)纳入241名接受维生素K2(每天45 μ克)联合钙治疗的骨质疏松患者,结果表明其骨密度保持稳定;而接受钙与安慰剂治疗者的腰椎骨密度下降了2.5%,且治疗组骨折减少了65%。
与骨骼代谢相关的维生素K2作用通路
编辑
doi: 10.3390/foods10123136.
维生素K2可通过与OC无关的机制调节骨代谢。MK-7可促使成骨细胞前体细胞上调ALP、Runx2和Osterix,并促进其分化为矿化型成骨细胞;相反,在破骨细胞中维生素K2会降低其分化并抑制骨吸收。其机制与抑制细胞因子诱导的NF-κB激活有关:MK-7及较轻的MK-4可抑制NF-κB,而维生素K1未表现出类似活性。
↘ 维持骨密度,减少因骨质疏松引起的骨折
临床研究还表明,维生素K2可维持腰椎骨密度,减少年龄相关的骨质疏松性骨折;也能减少糖皮质激素诱发的骨质疏松性椎骨骨折,并在肝功能障碍相关骨质疏松中维持腰椎骨髓性低估表现;在瘫痪患者中,维生素K2则可增加脑血管疾病患者上肢的掌骨密度。
为期三年的随机对照试验(RCT,LOE = A)提示,每天补充维生素K2 180 μ克可减少腰椎和股骨颈骨密度的正常年龄相关下降,但不影响全髋关节;同时,维生素K2(MK-7)还能防止下胸椎椎高的下降。
维生素K2对肾病有益
去磷酸化-非羧化MGP(dp-ucMGP)是维生素K缺乏的公认研究标志物,最早在慢性肾病患者中被报道。dp-ucMGP水平与慢性肾病进展相关:晚期患者循环中的dp-ucMGP更高。
↘ 慢性肾病人群常缺乏维生素K
维生素K缺乏见于多种慢性肾病人群,包括尿路结石、肾结石与尿毒症。随着慢性肾病阶段加重并进入维持性血液透析,维生素K状态往往更明显受影响;动物模型与人体研究均提示,肾功能恶化时MGP可能发生过度表达,从而反映肾功能的进一步下降。
↘ 补充维生素K2有助于改善肾小球滤过等功能
已有研究表明,补充维生素K2可改善肾动脉功能,并抑制肾动脉钙化继续发展;同时也可能改善患者队列中的肾小球滤过。
因此,维生素K2在慢性肾病领域具有广阔前景,相关大规模研究正积极评估其作为治疗策略的效果。
维生素K2可能预防关节炎
↘ 缺乏K2可能导致骨关节炎
新出现的证据提示,维生素K可能在预防致残性骨关节炎方面发挥重要作用。维生素K摄入不足时,软骨与骨骼可能出现异常矿化。
动物与人体研究发现,维生素K状态与骨关节炎风险相关。以一项纳入719名日本参与者的基于人群横断面研究为例,膝关节骨关节炎风险升高与较低的VK摄入有关。在校正年龄、性别、BMI、总能量摄入、血浆维生素D以及股骨颈骨密度后,结果仍支持维生素K状态与手、膝骨关节炎呈负相关。
↘ 维生素K2有助于降低类风湿性关节炎
有证据表明,维生素K2补充剂通过降低CRP水平来减少类风湿关节炎中的炎症。维生素K2可能诱导类风湿关节炎滑膜细胞的凋亡。
在一项横断面研究中,给予100 μ克MK-7的组在3个月后病变活跃度评分显著下降,同时生化标志物(ESR、CRP和基质金属蛋白酶)有所改善。
维生素K2改善血糖控制
长期补充维生素K2可降低糖尿病发生风险。最大的一项研究纳入约38000名20至70岁男女,结果显示每日仅10 μg K2即可将糖尿病风险降低7%。
其潜在机制也逐渐被阐明:维生素K2可激活骨钙素;体外研究表明它能促进胰腺β细胞增殖,并提高胰岛素产生及CyclinD1表达。
↘ 补充维生素K2提升胰岛素敏感性并改善血糖控制
在人类研究中,饮食/补充维生素K2摄入与胰岛素浓度和敏感性显著变化相关。研究证明,高MK-4摄入量(30 mg/天)对健康年轻男性(n = 18岁,25.5–31.5岁)的胰岛素敏感性指数显著提升,相比安慰剂组(n = 15,24–31岁)在4周内显著增加。
同样,一项长期大型研究也显示,维生素K摄入量(平均摄入量:VK1 200±98微克/天,VK2 3±1/7微克)与2型糖尿病风险降低之间呈线性反相关。
维生素K补充剂可能作为一种新型辅助疗法,以改善血糖控制和生活质量。
维生素K2可能具有抗癌效果
目前已有大量研究探讨维生素K家族的潜在抗癌作用。
↘ 维生素K2有助于抑制肝细胞癌、肺癌细胞等
维生素K2可能通过多种途径发挥作用,包括蛋白激酶A、蛋白激酶C、核因子κB以及类固醇和外来受体。抑制人类肝细胞癌的生长与侵袭,并对肿瘤复发产生中度抑制。
体外研究还显示,其对肺癌细胞生长的抑制呈剂量依赖性,胰腺癌细胞亦观察到类似效应。一项纳入超过11000名患者的队列研究表明,较高的维生素K2与晚期前列腺癌显著减少相关;而维生素K1摄入增加与前列腺癌减少无关。
维生素K2调节神经认知
维生素K2可能通过多种机制支持神经功能。维生素K2的肝外活性已通过不同组织中K2循环酶的活性变化在体内得到阐明。
↘ 维生素K2对神经元有保护作用
值得注意的是,维生素K2酶在大脑中表达高度。已有文献记录K2对神经元的保护作用。MK-4提高了能量产生,并挽救了帕金森病中发现的PINK1突变。
此外,多种维生素K2类似物已被发现在神经元分化中起决定性作用。首个关于K2与神经元活动相关的流行病学研究涉及45名多发性硬化症(MS)患者和29名健康志愿者。与性别和年龄依赖的对照组相比,MS患者的K2水平显著降低。此外,K2水平与神经痉挛和视神经损伤相关。这些新兴研究表明,维生素K2在神经发育和疾病中可能扮演重要角色。
↘ 补充维生素K有助于改善认知及阿尔兹海默症
维生素K可能在阿尔茨海默病的发病机制中起作用,因为它在大脑中调节胰岛转移酶活性和生长因子/酪氨酸激酶受体活性。
有证据表明,阿尔茨海默病老年人的维生素K摄入量显著低于社区对照组。摄入维生素K可能改善健康老年人的认知功能。一项研究显示,维生素K与更好的言语情节记忆表现相关,尤其是在回忆任务中。维生素K拮抗剂的使用与认知障碍更频繁相关。
维生素K2影响免疫
近年来,体外研究提示维生素K2具有此前未知的免疫调节作用。
↘ 维生素K2可调节TNF-α、IL-1的表达
首先,MK-7可调节TNF-α、IL-1α和IL-1β的表达。研究还发现,维生素K2可抑制健康个体T细胞的增殖,而K1则无类似效果。
该结论在更多患有特应性皮炎的儿童及健康对照者的T细胞中得到验证,并得到透析患者独立研究的支持。两项研究均表明,维生素K2可减少活化T细胞数量并抑制其增殖。
综上,现有证据支持维生素K2可能作为新型免疫抑制剂发挥作用;其具体生理机制仍需进一步阐明。
维生素K2还可能影响肝脏健康与代谢
↘ 维生素K2对肝脏健康具有积极作用
维生素K在肝脏中的作用已明确:参与凝血因子生成及VKDP激活。既往研究多关注K1,但K2生物活性更高,可能与肝组织中的作用类似。近期研究还提示,维生素K2可能促进卵形细胞再生,并促进干细胞培养中肝细胞的成熟。
此外,多项试验发现MK-4对由酒精性与非酒精性肝硬化引发的肝癌具有有效的抑制作用;维生素K2补充在肝硬化治疗中也呈积极趋势。然而仍需进一步研究,以确定其效果是否具有统计学意义,并阐明维生素K2在肝病中的作用机制。
↘ 较高维生素K2与代谢综合征发生率较低相关
也有研究探讨了维生素K2与代谢综合征(MetS)之间的关联。
在一项10年随访研究中,纳入女性(n=402;49–70岁)和男性(n=400;40–80岁),结果显示高VK2摄入量(210.3 ± 127.0 μg/d)与MetS发生率降低相关(反映为三酰甘油水平下降及腰围减小);而VK1治疗组(31.1 ± 12.5 μg/d)未见类似相关性。
但一项包含5800名成年人(20–45岁)的横断面研究并随访6年发现,较高的VK1摄入量(84.8 ± 3.2 μg/天)可能有利于降低MetS患病率(以高血压下降和HDL胆固醇升高为指标)。
前面已梳理出维生素K2在多方面具有关键的生理作用,那么当机体处于维生素K2缺乏状态时,相关的代谢与调控过程可能就会失衡,从而带来一系列潜在危害。
维生素K缺乏的症状
维生素K是多种凝血相关蛋白的γ-羧化所必需的辅因子;当维生素K不足时,凝血级联中部分蛋白活性下降,可能导致凝血功能下降,增加出血倾向,表现出以下症状:
此外,维生素K缺乏还可能引发多个与维生素K相关的生理过程受到干扰:
1
骨代谢异常
维生素K2参与骨相关蛋白(如与矿化相关的蛋白)的激活,影响骨形成与骨矿化平衡。
缺乏时可能出现:
•骨密度下降;
•骨质量变差(矿化不足);
•骨折风险增加(尤其是中老年人群)。
2
血管钙化风险升高
维生素K2能促进某些“抗钙化”相关蛋白的活化;当K2不足,这些保护性作用减弱。
结果可能表现为:
•更容易发生动脉壁钙化;
•血管弹性下降;
•长期来看可能增加心血管事件风险。
3
慢性低度炎症与慢病风险
维生素K2除具有多种潜在作用外,还可能参与炎症相关的生物学反应;同时CRC相关材料提示,VK2同系物可影响炎症因子,例如在实验体系中抑制IL-8、IL-6、TNFα等促炎因子。
维生素K2缺乏的潜在危害:
•如果K2相关的抗炎/免疫调节效应不足,可能更容易出现或维持低度炎症状态;
•从而间接提高与炎症相关的慢病风险(具体到哪一种疾病,取决于人群、剂量、同系物构成、遗传与合并用药等)。
4
肠道菌群失衡
维生素K2很大一部分由肠道细菌合成,并与菌群之间存在互作关系;K2还能调节菌群动态,且与炎症及代谢相关状态密切相关。
因此维生素K2缺乏的危害可能还有:
•维生素K2缺乏可能反映或加重菌群失衡;
•菌群与K2的耦合变化可能影响代谢与炎症微环境;
•但“丰度变化→血清K2→临床终点”的因果链目前并不总是直观成立。
注:本文将在其中一个章节详细阐述肠道菌群与维生素K2之间的相互作用。
5
脂肪/代谢相关功能可能受损
维生素K2与代谢过程存在关联研究线索(例如与代谢综合征发生率、代谢指标的相关性)。
缺乏可能在部分人群中表现为代谢调控不佳,从而间接提高糖代谢异常、血脂异常与血压异常的风险(具体因果强度仍需进一步研究证实)。
6
神经系统与肌肉功能可能受影响
已有研究表明,维生素K2在神经系统相关通路中存在表达并发挥保护作用。
维生素K2缺乏可能在易感人群中与以下风险相关(多为“潜在/可能”):
•神经保护能力下降;
•神经功能维持不足;
•进一步影响认知与运动相关能力。
编者小结
维生素K2缺乏最可能的危害清单:
1.凝血风险升高:维生素K依赖凝血蛋白羧化不足。
2.骨健康下降:与骨代谢相关的维生素K依赖蛋白成熟不足,可能增加骨质疏松/骨重建失衡风险。
3.血管异常钙化倾向:影响连接组织钙化调控相关维生素K依赖蛋白。
4.炎症/慢病相关风险可能上升:维生素K2的抗炎/细胞保护方向减弱。
5.菌群生态可能进一步失衡:维生素K2—菌群互作可能形成双向反馈。
维生素K2不只参与凝血相关过程,还与骨代谢与矿化平衡、血管/组织钙化调控,以及炎症与慢性低度炎症、代谢稳态等生理活动存在联系。因此,当机体进入维生素K2缺乏状态时,相关代谢与调控环节可能失衡,进而带来潜在危害。
其风险表现包括:凝血功能受影响导致易淤青、瘀点、鼻/牙龈出血、伤口止血变慢、月经过多或异常出血等;以及骨代谢异常(骨密度下降、矿化不足、骨折风险增加)和血管钙化倾向(动脉壁钙化、血管弹性下降)等长期后果。
同时,维生素K2与炎症调节及肠道菌群互作的关联提示其缺乏可能影响炎症微环境与炎症相关慢病风险;但从“血清维生素K2变化”到“临床终点”的因果链并非在所有情境下都能直接成立。
总体来看,维生素K2缺乏的潜在影响具有多维度特征,后续可进一步结合肠道菌群与维生素K2的相互作用展开说明。
拓展:维生素K过高是否会有危害?
目前几乎没有动物或人类发生自然维生素K系统性毒性的报道。
尽管有人担心过多维生素K可能导致过度凝血,但尚未观察到这一现象,可能与γ羧化位点有限有关。相反,极高剂量维生素K可能引发低凝血酶原血症,人类病例中已有罕见记录。
★ 通常情况下不会造成危害
已有的人类数据表明,每日服用10 mg维生素K、连续1个月未见不良反应,与动物实验结果一致:在同等时间范围内,即使剂量达到2 g/kg也被认为是安全的。
一般来说,维生素K的副作用仅限于局部,例如过量服用维生素K2后出现轻微的胃肠道不适和皮疹,在停止服用后消失。
导致维生素K2缺乏,往往不是单一原因“突然缺了”,而更像是多条环节逐渐失去配合——从你吃进身体的食物,到它能不能被吸收、被运输、被利用,再到肠道菌群是否还在“按时供货”。当这些环节出现偏差,维生素K状态(尤其是与K2相关的功能供给)就可能跟不上身体需求。
此外,维生素K2并不是“一个数值搞定”。不同K2同系物在结构、生物利用度、体内分布与持续作用上存在差异;同样的摄入量,在不同人群中也可能转化为不同的功能性供给结果。再叠加个体差异(例如慢性炎症/代谢状态、可能影响维生素K相关通路的因素),就更容易出现“表面摄入并不极低,但功能层面仍接近不足”的情况。
1
摄入不足
↘ 饮食中维生素K2少、长期摄入不规律
人体自身不能在体内合成维生素K:脊椎动物依赖饮食供给;如果缺少规律摄入,体内储备会迅速被耗尽,这会构成维生素K缺乏的根本前提。
VK2主要来自特定食物谱:VK2主要来自发酵食品、部分奶酪及动物性来源;若饮食结构长期偏向“低发酵食品/低动物性、摄入以不含或少含VK2的食物为主”,更容易出现VK2摄入不足。
↘ 仅补“VK1”但不补“VK2”
部分研究/综述强调维生素K1与维生素K2在来源、吸收、靶向活性上存在差异;因此当饮食或补充只提供维生素K1而缺乏维生素K2等同系物时,不能自动等量“覆盖维生素K2的生物学需求”。
2
吸收障碍
维生素K属于脂溶性营养素,其被吸收与利用通常与消化吸收条件高度相关;若脂肪消化吸收受限,会削弱脂溶性维生素K(包含K2异构体)的吸收效率。
↘ 胆汁/脂肪吸收相关问题会降低K吸收与利用
维生素K2属于脂溶性维生素,其获得与利用往往高度依赖机体对脂溶性营养素的吸收条件;与此同时,不同形式的VK在吸收表现与体内运输机制上存在差异,而这些机制又要求机体能够完成有效吸收。因而,当这一有效吸收的过程出现不足或受损时,就会在总体层面上导致吸收环节出现障碍。
↘ 肠道转运与吸收相关蛋白/过程受影响
有文献中讨论维生素K在肠道吸收与代谢中的机制研究(如肠道受体/转运相关通路作为维生素K吸收调控因素),提示任何影响肠道吸收效率的因素,都可能把机体推向“维生素K状态下降”,从而造成VK2功能性缺乏。
3
肠道菌群失衡
↘ 肠道菌群失衡,内源性维生素K2供给下降
维生素K2可由肠道细菌生成,因此,当肠道菌群组成或功能受损时,内源性VK2供给可能下降。并且当炎症或代谢失衡导致菌群进一步失稳,也可能形成维生素K2生成/利用的不利循环。
↘ 化学用品和抗生素的过量使用
随着农业生产现代化推进,农药、化肥残留在农产品中的比例上升,且食品加工中防腐剂与人工添加剂的使用增加,可能导致肠道菌群失调,从而不利于VK2的微生物合成。
此外,抗生素可通过抑制或破坏产VK2细菌而降低VK2生成,头孢菌素类(如头孢糖素类)的影响尤为明显。质子泵抑制剂也可能影响VK2水平,其作用机制可能与对肠道菌群的影响相关。
4
药物使用
维生素K可与部分药物发生相互作用,从而影响体内维生素K2的浓度及其生物学效应。
↘ 华法林是一种维生素K拮抗剂
华法林属于香豆素类抗凝剂与维生素K拮抗剂,通过阻断肝脏及外周循环中的维生素K利用,导致继发性维生素K缺乏,进而可能对血管、骨骼、肾脏、大脑及其他系统(如炎症、免疫功能与肿瘤相关过程)产生不利影响。
VK2也可能与其他香豆素类抗凝剂(如酚丙香豆素、乙酰藻黄醇和硫氯马罗尔)发生严重相互作用。
↘ 降胆固醇和降脂药也会影响维生素K吸收
在胆固醇降药物方面,如考来替泊可通过阻断胆酸再吸收来降低胆固醇,但也会同时减少胆固醇及其他脂溶性维生素的吸收。奥利司他可降低肠道对膳食脂肪的吸收,因此可能削弱VK的吸收。
他汀类是常用的降脂药物,主要通过降低胆固醇以减少动脉粥样硬化风险,此外,他汀类药物还可能抑制VK2的合成。VK2是基质Gla蛋白(MGP)激活所需的辅因子,而MGP可帮助保护动脉免受钙化。有观点推测,由于他汀类在临床使用广泛,可能在心力衰竭与动脉粥样硬化的高发率上产生看似相互矛盾的加剧效应。
↘ 降磷药物治疗会影响维生素K的利用
在慢性肾病患者中,高磷血症较常见,因此需要使用降磷药物。研究发现,磷酸结合剂可能降低VK2的生物利用度。
体外研究显示,醋酸钙/碳酸镁、碳酸镧、碳酸钙及塞维拉麦碳酸盐均可能与VK2结合,影响其吸收,并可能削弱VK2抑制血管钙化的效果。
在一项纳入多位使用磷酸结合剂的慢性肾病患者研究中,使用塞夫拉默者的去磷化-非羧化MGP水平更高,提示维生素K水平可能降低。不过,这些相互作用的临床意义仍存在争议。
5
生理与遗传因素
↘ 体内转运与生物利用度差异
维生素K异构体的“运输路径、半衰期、组织分布、生物利用度”不同,这意味着即使总维生素K摄入看似存在,但维生素K2在体内到达靶组织并完成相关羧化修饰的效率也可能较低。
并且维生素K2包含不同链长同系物(如MK-4、MK-7等),其作用持续时间与体内行为不同。若某个群体摄入的维生素K2同系物谱不足(例如以某类同系物为主而另一类缺乏),可能出现对特定通路的激活不足,表现为功能性维生素K不足状态(即“缺乏的不是总量,而是对靶点的供能不足”)。
↘ 年龄、疾病会影响人体对维生素K的吸收
某些疾病状态会让机体更容易出现维生素K状态下降,如肝胆疾病患者以及代谢疾病老年患者的吸收能力下降可能导致维生素K2缺乏。
人体胃肠道的吸收能力随着年龄增长逐渐下降,这可能导致中老年人出现维生素K2缺乏症,因此有必要补充膳食。此外,新生儿也存在维生素K缺乏的风险,因为自身维生素K储备不足,母乳中的维生素K水平较低,未成熟的胃肠道微生物群很可能不是维生素的来源。
注:有研究发现纯母乳喂养的婴儿比配方奶喂养的婴儿更容易患维生素K维生素低水平。
总结:维生素K2缺乏的“病因框架”
1.摄入不足:人体不合成 + 储存被耗尽;维生素K2主要来自发酵/特定动物性食物。
2.吸收障碍:维生素K2为脂溶性,消化吸收条件改变会降低吸收与利用。
3.肠道菌群失衡:菌群生成维生素K2与互作关系,菌群功能下降→供给不足。
4.药物使用:部分药物是维生素K2的拮抗剂,影响其吸收利用。
5.体内利用/转运差异:维生素K1与维生素K2生物利用度、运输与靶向激活不同,可能出现“功能性缺乏”。
6.疾病/代谢需求改变:衰老与慢性疾病背景使维持足够状态更困难。
肠道微生物并不单是人体肠道的“居住者”,它们更像一个持续运转的代谢工厂:一方面,菌群能够合成并补给宿主所需的维生素家族(主要为大多数水溶性B族维生素及维生素K2);另一方面,这些微生物衍生分子又会进一步塑造肠道局部环境,影响免疫稳态与炎症生态位。
维生素K2正是这作用网络中的关键一环——它由特定肠道菌群产生,当宿主免疫状态、生命阶段与饮食结构改变时,这个供给又会被重塑。
本章将系统阐释维生素K2与肠道微生物群之间有哪些具体相互作用,以及这些作用如何为理解肠道稳态与疾病风险提供新的机制视角。
▸ 肠道菌群对维生素K2的“供给功能”
编辑
为了更好地理解肠道里维生素K2是怎么被细菌“造出来的”?我们先把生物合成这条“生产线”讲清楚。维生素K2的合成并不只依赖一种原料,许多碳源都可以进入细菌的代谢系统并最终被用来制造维生素K2。
↘ 维生素K2的生物合成过程
从结构上看,维生素K2的分子主要由两部分组成:
细菌生成VK2的过程可以概括为:先把甘油/糖类等底物加工出异戊二烯前体(用于做侧链)和DHNA骨架(用于做环),再通过特定的通路把侧链拼到骨架上,最后甲基化完成甲萘醌形成。
维生素K2的生物合成代谢途径
编辑
doi: 10.1016/j.biotechadv.2019.
↘ 能够合成维生素K2的肠道细菌
宏基因组和大规模人群研究表明,肠道菌群在结肠等部位对维生素稳态具有功能性供给作用。多数产维生素的微生物群通常只能合成单一类B或K2维生素,能够产生五种或更多维生素的细菌仅占2.7%。研究通过菌株筛查来评估内源性VK2的合成能力,并提出明确的候选菌有以下几种:
•Lactobacillus(乳杆菌属)
•Bifidobacterium(双歧杆菌属)
•Bacillus(芽孢杆菌属)
并且不同菌群可能负责不同MK形式(MK-4、MK-7、MK-9等),下面这些细菌也被发现能够产生维生素K2:
编辑
维生素合成途径的关键微生物贡献者
编辑
doi: 10.1128/msystems.00929-24.
▸ 菌群组成与菌源VK2水平的相关性
↘ 粪便中菌源维生素K2与肠道菌群组成相关
有研究测量粪便与血清中的维生素K2:发现粪便中菌源维生素K2呈现个体差异,且其水平与肠道微生态组成(如与特定菌群相关)有关;但在该研究中维生素K2未在血清中检出。
↘ 一些菌属可能与维生素K2水平共同波动
在健康成人研究中,识别了与维生素K2水平相关的菌群,提示Bacteroides、Prevotella等与维生素K2水平存在共同波动的现象,即当这些菌群相关指标发生变化时,维生素K2水平也会表现出相应的变化,从而反映出维生素K2与特定肠道菌群组成之间可能存在紧密耦合关系。
▸ 维生素K2在肠道的功能效应
↘ 可进入并作用于肠道相关细胞
编辑
结直肠癌研究显示,维生素K2(特别是长链同系物)能够进入肠上皮细胞(如Caco-2)并表现非毒性效果,提示其并非只能停留在肠腔中作为“旁观代谢物”,而可能在局部细胞界面发生作用。
↘ 长链同系物更可能与抑制促炎因子相关
研究强调:维生素K2-MK7与维生素K2-MK9可降低促炎细胞因子(如IL-8、IL-6、TNFα),从机制层面提示“菌群产出的哪类同系物”会影响“局部炎症生态位”。这把“菌群—代谢产物—炎症表型”连接起来。
维生素K2同源物对肠上皮细胞促炎IL-8浓度的影响
编辑
doi: 10.1186/s12935-023-03114-2.
炎症因子下降意味着肿瘤微环境的“驱动因子”被削弱:IL-8、IL-6与TNFα等促炎因子通常与肿瘤炎症微环境、免疫抑制/募集、上皮细胞应激等相关。维生素K2同系物能降低这些因子分泌,提示其可能改变CRC的炎症生态位,使得肿瘤发生发展的条件不那么“有利”。
▸ 在免疫稳态中的双向调控
↘ 微生物来源维生素可作为免疫稳态的协同因子
人类主要从饮食获得维生素,但肠道微生物是重要补给来源;并且肠道菌群与免疫系统互作会改变维生素生物合成,进而影响免疫反应与肿瘤免疫治疗效果。
↘ 供给不足在免疫层面可能放大风险
维生素在多种细胞过程中的重要性使得即便是轻微缺乏也可能造成健康问题。如果菌群失衡导致维生素K2供给减少或同系物谱改变,则可能通过免疫炎症通路影响肠道稳态与肿瘤微环境。
▸ 影响菌群产生维生素K2的因素
↘ 超过80岁老人与婴儿产生维生素K2能力较弱
对维生素相关基因丰度的分析显示,与宿主年龄密切相关的差异清晰可辨。具体而言,成人与80岁及以上健康老年人之间,在微生物维生素生物合成途径上存在最显著的差别。
80岁以下老年人的肠道微生物群维生素合成能力仍与年轻成人相对相近。相较之下,当年龄超过80岁时,九种维生素中有七种的生物合成能力显著下降,提示持续且渐进的功能衰退。
不同生命周期微生物群来源的维生素合成基因
编辑
doi: 10.1128/msystems.00929-24.
与健康成人相比,婴儿在九条微生物维生素生物合成途径中有六条的相关指标减少21%至49%。这一结果提示,出生后前三年微生物群的功能尚未完全成熟。
↘ 不同地域人群合成维生素K2能力不同,可能与饮食差异有关
此外,地理来源显著影响维生素生物合成通路的多样性/丰度,其中包括K相关合成潜力,从而意味着维生素K2“可由微生物提供”的程度会在不同人群中变化。
主要维生素生产细菌丰度因地理来源而异
编辑
doi: 10.1128/msystems.00929-24.
这可能与饮食差异有关,如全谷物与精制谷物饮食使粪便维生素K2水平出现差异,这提示饮食通过重塑底物/发酵环境,从而改写菌群组成,并最终影响维生素K2的输出。
不同地理区域的维生素生物合成潜力
编辑
doi: 10.1128/msystems.00929-24.
编者小结
肠道菌群和维生素K2之间的关系,像是一条在肠道里持续运转的协作链:菌群会提供维生素K2所需的合成能力与底物环境,而维生素K2不同的同系物(如长链形式)又可能反过来影响肠道局部细胞的状态与炎症水平。
在“供给”层面,能合成维生素K2的细菌并不只依赖单一原料;它们通过各自的代谢通路把底物加工成维生素K2的关键结构,再一步步完成拼接与修饰。研究提示,粪便中的菌源维生素K2水平会因人而异,并且可能与某些菌群的变化同步,说明菌群组成与维生素K2输出之间存在紧密关联。
在“效应”层面,维生素K2可以进入肠上皮相关细胞,并显示出调节作用。尤其是一些长链同系物更倾向于与促炎因子下降相关,这意味着它可能帮助“调低”肠道炎症生态位,从而为肠道稳态和结直肠癌等相关疾病微环境带来更好发展的方向。
从整体人群看,这套供给能力还会随年龄与生活方式而变化:例如80岁以上人群与婴儿的合成能力往往更弱;而不同饮食结构也会影响粪便维生素K2水平。总的来说,维生素K2像是菌群与肠道健康之间的一座“桥梁”,它的产量与类型会随菌群和环境而改变,进而影响炎症、免疫稳态以及相关疾病风险。
如何测量自身维生素K(K2)?
准确评估维生素K缺乏并不容易;即使借助最先进的检测手段,在人体生物样本中也很难准确确定其含量。维生素K可在血浆中测量,但由于其存在多种形式,且异常的脂质成分可能干扰结果,因此检测精度仍受限制。目前主要采用以下几种方法:
注:除非摄入量高,否则维生素K2在血液中通常非常低或难以检测,因此血液中的缺失并不总是意味着严重缺乏。
⑴ 直接测量—主要是色谱、质谱
色谱方法已成为直接测量维生素K的主流路线:先用液相色谱把不同K同系物分离,再用特定检测器(如荧光或质谱)定量。
在多种维生素K检测中,MS(质谱)成为首选的原因是它能更专一地区分多种同系物/同分异构体。不过局限仍存在:复杂样本前处理会影响回收率与结果一致性。
⑵ 不直接测K本身—功能性生物标志物
如果维生素K缺乏,会导致维生素K依赖的γ-羧化反应不足,于是相关蛋白以未羧化形式释放或检测到。
①未羧化的维生素K依赖蛋白
机制:维生素K缺乏 → Gla蛋白无法正常羧化 → 以未羧化形式释放。因此未羧化蛋白可作为替代定量靶点。
局限性:
-并非所有未羧化蛋白都会被分泌;
-表达升高可能压倒羧化系统;
-并非只有凝血相关Gla蛋白在健康人群都能100%羧化;
-时间因素/半衰期差异:不同凝血因子的半衰期不同,导致某些指标对轻度缺乏的敏感性与“出现时间窗口”不同。
②去羧前凝血酶—早期标志物,但敏感性较低
去羧前凝血酶(PIVKA II)是较早被用于维生素K状态评估的标志物,但敏感性较低。
③未羧化骨钙素—骨维生素K状态标志物
另一种评估骨相关维生素K状态的标志物是未羧化骨钙素。
局限性:
-总骨钙素含量不同个体差异大,所以“未羧化比例”可能更合适;
而且雌激素水平可能影响相关解读。
④未羧化-未磷酸化MGP—与血管/软组织钙化风险相关
MGP(矩阵Gla蛋白)与组织钙化调控相关,因此它更偏向“组织层面K效应”,但仍需结合检验方法与生理背景。
⑤尿液Gla残基(Gla残留浓度)— 维生素K膳食耗竭的敏感标志之一
对维生素K1膳食耗竭,尿液中Gla残留浓度是较敏感的标志物。对维生素K2缺乏的数据不足,尚未确定可靠的“界限值”。
通常需要24小时尿液采集(对依从性影响大)。
根据谷禾检测报告判断你的维生素K
谷禾肠道菌群检测通过分析你的肠道菌群组成与相关特征,可以在一定程度上提供关于你维生素K2状况的线索。
编辑
⑴ 维生素K2相关功能的线索
谷禾报告通常会给出菌群组成/优势菌属,有时也会做功能预测(或与健康维度的关联解释)。你要做的是:
找到报告里与“维生素相关合成/代谢”、或与维生素K(K2)、或与脂溶性维生素代谢/发酵相关的描述。
⑵ 可能影响维生素K2吸收的环境
维生素K2是脂溶性,吸收强依赖脂质运输与胆汁环境。所以你的菌群报告里如果能看到:
•胆汁酸相关、脂质代谢相关的风险信号(如某些与胆汁代谢不良有关的表现);
•导致吸收不佳的肠道状态(如消化吸收弱、炎症信号提示等)。
这部分能帮助解释:即便菌群“潜在供给”不错,你血/组织维生素K2也可能并不高。
⑶ 炎症/生态失衡解释“利用率”与长期效果
前面读到的维生素K2描述强调其可能涉及炎症相关过程。若谷禾报告提示菌群失衡或炎症倾向:
需要把策略从“只补维生素K2”转向“稳菌群生态 + 配合K2供给”,更符合系统性调节思路。
如何有效提高维生素K2水平?
由于维生素K2水平通常不会过高,所以我们这里只介绍在水平偏低时如何提升。具体可以从三个方向来入手,也就是围绕“补给 + 饮食 + 菌群生态位”这三方面展开:
首先在补给层面考虑提供与维生素K2相关的直接补充剂;其次在饮食层面,通过饮食结构与可发酵成分等因素提供合适的食物和发酵基础;最后在菌群生态位层面,结合菌群状态去理解并调整肠道内更利于相关功能发挥的生态环境。
维生素K的每日推荐摄入量因年龄、性别和生理状态而异。一般而言,成年男性每日需约120微克(0.12毫克),女性为90微克(0.09毫克),孕妇或哺乳期女性需75-90微克。婴幼儿及青少年需求量随年龄递增,从2微克到75微克不等。而饮食中的维生素K2摄入量平均约占维生素K总摄入量的25%。
⑴ 直接补充维生素K补充剂
常见策略是选:
•MK-7(长链,常用,半衰期通常更长);
•或在特定场景选MK-4。
具体选哪种同系物,最好与你的目标(骨/血管/炎症倾向)和复测结果对齐。
用法策略(安全与可评估):
先小幅、持续:连续用8–12周是比较常见的“观察窗口”;
复测同样指标:看浓度/同系物谱是否上升,以及你关心的功能读出是否改善。
药物干扰(非常关键):
若你在用华法林或其他维生素K拮抗药:
不要自行开始/加量补K2;
必须由医生调整剂量,并加强INR监测;
这点直接关系安全性。
⑵ 饮食补充外源性维生素K2
饮食层面要抓两个点:
1.维生素K2的直接来源;
2.脂肪同食与吸收环境(因为K2脂溶性)。
不同食物中维生素K1和维生素K2的含量
编辑
Zhang T,et al.Foods.2024
富含维生素K2的食物主要有以下几类:
①发酵食品(主要来源):
纳豆(由芽孢杆菌发酵大豆制成):含最高K2含量,尤其富含 MK-7(K1:321 ng/g;K2:10985 ng/g)。
酸菜:维生素K2的重要来源之一。
②发酵乳制品
奶酪:尤其陈年/发酵更久的类型。
酸奶:不同品牌/工艺差异很大,但可作为常规摄入。
③部分肉类和动物内脏
肉类中维生素K2在以下样本有较高含量(以微克/100克计):
鸡肉:10.1
牛肝:11.2
肉末:7.6
牛肉:1.9
猪肝:1.8
④部分鱼类
鳗鱼:63.1 微克/100克(最高);
比目鱼:5.3 微克/100克;
鲭鱼:0.6 微克/100克;
鲑鱼:0.6 微克/100克。
⑶ 调整饮食—改变菌群代谢环境和底物
饮食结构会通过改变肠道菌群在代谢过程中可获得的底物类型与供给方式,进而影响菌群代谢这些底物的效率与方向;在这样的变化之下,菌群产生维生素K2的过程也会随之受到影响。
建议的可执行食物结构:
主食优先全谷物:燕麦、糙米/胚芽米、全麦面包、藜麦等;
每天加入可发酵纤维:豆类(鹰嘴豆、扁豆、红豆等)、多种蔬菜(尤其叶菜之外),并适量藻类/菇类(按耐受选择)。
时间与频率:
建议至少持续8–12周再评估指标:菌群结构与代谢输出的改变通常不会在“几天内”立刻显现。
⑷ 菌群策略:补充益生菌
益生元(纤维)更像是“喂环境”,通常更稳妥。
也可以考虑直接补充枯草芽孢杆菌(Bacillus subtilis)、乳酸菌(Lactococcus lactis,Leuconostoc lactis,Leuconostoc mesenteroides)等能够代谢产生维生素K2的细菌。不过益生菌是否能提升K2同系物输出,取决于你的菌群背景与生态位是否匹配。
因此最好的做法仍然是:干预后复测K2或菌群结构,而不是只凭感觉。
维生素K2不仅参与传统的凝血过程,还与骨健康、心血管代谢、免疫炎症以及血糖控制等多方面息息相关。更关键的是,维生素K2在体内的“作用落点”,并非孤立存在——它离不开肠道菌群的持续参与与共同调控:一方面,肠道菌群能够合成并在一定程度上为宿主提供维生素K2相关物质;另一方面,菌群及其代谢产物会进一步塑造肠道局部环境,影响炎症水平与免疫稳态,从而左右炎症生态位与整体健康水平。
因此,在关注维生素K2时,更应该把视线延伸到肠道微生态与菌群结构。与其只纠结“要不要补维生素K2”,不如思考“为什么同样的补充效果在不同人身上可能不一样”。当菌群生态失衡、肠道环境不利时,维生素K2的摄入与利用可能难以充分发挥;而当饮食与生活方式为菌群提供合适的生存条件时,相关功能更可能在体内被更有效地启动。
维生素K2很重要,但菌群生态的健康状态同样决定了它在体内能否被更好地“用起来”。因此,除了饮食习惯以外,还要从更系统的生活方式入手——例如规律作息、适度运动、压力管理、减少过量饮酒和不必要的抗生素使用、保证充足睡眠等,帮助维持更有利的肠道环境与免疫稳态。或许正是这些协同作用,更能帮助降低疾病风险,提升整体健康水平。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Schwalfenberg GK. Vitamins K1 and K2: The Emerging Group of Vitamins Required for Human Health. J Nutr Metab. 2017;2017:6254836.
Halder M, Petsophonsakul P, Akbulut AC, Pavlic A, Bohan F, Anderson E, Maresz K, Kramann R, Schurgers L. Vitamin K: Double Bonds beyond Coagulation Insights into Differences between Vitamin K1 and K2 in Health and Disease. Int J Mol Sci. 2019 Feb 19;20(4):896.
Zhang T, O’Connor C, Sheridan H, Barlow JW. Vitamin K2 in Health and Disease: A Clinical Perspective. Foods. 2024 May 24;13(11):1646.
Yan Q, Zhang T, O’Connor C, Barlow JW, Walsh J, Scalabrino G, Xu F, Sheridan H. The biological responses of vitamin K2: A comprehensive review. Food Sci Nutr. 2023 Jan 6;11(4):1634-1656. doi: 10.1002/fsn3.3213. Erratum in: Food Sci Nutr. 2025 Jan 27;13(1):e70005.
Mladěnka P, Macáková K, Kujovská Krčmová L, Javorská L, Mrštná K, Carazo A, Protti M, Remião F, Nováková L; OEMONOM researchers and collaborators. Vitamin K – sources, physiological role, kinetics, deficiency, detection, therapeutic use, and toxicity. Nutr Rev. 2022 Mar 10;80(4):677-698.
Bus K, Szterk A. Relationship between Structure and Biological Activity of Various Vitamin K Forms. Foods. 2021 Dec 17;10(12):3136.
Simes DC, Viegas CSB, Araújo N, Marreiros C. Vitamin K as a Diet Supplement with Impact in Human Health: Current Evidence in Age-Related Diseases. Nutrients. 2020 Jan 3;12(1):138.
Tarracchini C, Lugli GA, Mancabelli L, van Sinderen D, Turroni F, Ventura M, Milani C. Exploring the vitamin biosynthesis landscape of the human gut microbiota. mSystems. 2024 Oct 22;9(10):e0092924.
Tarracchini C, Bottacini F, Mancabelli L, Lugli GA, Turroni F, van Sinderen D, Ventura M, Milani C. Approaches to dissect the vitamin biosynthetic network of the gut microbiota. Microbiome Res Rep. 2025 Oct 20;4(4):37.
Ren L, Peng C, Hu X, Han Y, Huang H. Microbial production of vitamin K2: current status and future prospects. Biotechnol Adv. 2020 Mar-Apr;39:107453.
Smajdor J, Jedlińska K, Porada R, Górska-Ratusznik A, Policht A, Śróttek M, Więcek G, Baś B, Strus M. The impact of gut bacteria producing long chain homologs of vitamin K2 on colorectal carcinogenesis. Cancer Cell Int. 2023 Nov 10;23(1):268.
Zhang Z, Liu L, Liu C, Sun Y, Zhang D. New aspects of microbial vitamin K2 production by expanding the product spectrum. Microb Cell Fact. 2021 Apr 13;20(1):84.
Hariri E, Kassis N, Iskandar JP, Schurgers LJ, Saad A, Abdelfattah O, Bansal A, Isogai T, Harb SC, Kapadia S. Vitamin K2-a neglected player in cardiovascular health: a narrative review. Open Heart. 2021 Nov;8(2):e001715.
Kozioł-Kozakowska A, Maresz K. The Impact of Vitamin K2 (Menaquionones) in Children’s Health and Diseases: A Review of the Literature. Children (Basel). 2022 Jan 5;9(1):78.
Gholami H, Chmiel JA, Burton JP, Maleki Vareki S. The Role of Microbiota-Derived Vitamins in Immune Homeostasis and Enhancing Cancer Immunotherapy. Cancers (Basel). 2023 Feb 18;15(4):1300.
Xue L, Singla RK, Qin Q, Ding Y, Liu L, Ding X, Qu W, Huang C, Shen Z, Shen B, Miao L. Exploring the complex relationship between vitamin K, gut microbiota, and warfarin variability in cardiac surgery patients. Int J Surg. 2023 Dec 1;109(12):3861-3871.
Karl JP, Meydani M, Barnett JB, Vanegas SM, Barger K, Fu X, Goldin B, Kane A, Rasmussen H, Vangay P, Knights D, Jonnalagadda SS, Saltzman E, Roberts SB, Meydani SN, Booth SL. Fecal concentrations of bacterially derived vitamin K forms are associated with gut microbiota composition but not plasma or fecal cytokine concentrations in healthy adults. Am J Clin Nutr. 2017 Oct;106(4):1052-1061.
谷禾健康
土壤作为地球上生物多样性最丰富的栖息地之一,不仅是植物生长的基础,也是众多微生物的”家园”。
然而,这片看似平静的地下世界,却隐藏着威胁人类健康的”隐形杀手”——人类细菌病原体。如单核细胞增生李斯特菌、铜绿假单胞菌、炭疽杆菌、沙门氏菌、大肠杆菌、结核分枝杆菌复合体和鼠疫杆菌等危险病原体,都可能在土壤中找到生存的港湾。
据统计,2019年全球约有770万例死亡与人类细菌病原体有关,这些数字背后,土壤作为病原体的自然来源和传播媒介,扮演着不容忽视的角色。
人类病原体通过多种途径进入土壤:动物和人类排泄物的渗透、农业实践中的灌溉和粪便应用、空气传播的病原体和孢子沉积等。一旦进入土壤,这些病原体可能成为常驻微生物组的一部分,并通过生食摄入、直接接触、吸入或昆虫及野生动物传播等多种途径感染人类。
本文基于最近一篇发表在《Cell Host & Microbe》上题为“Soil microbial diversity associates with lower prevalence of human bacterial pathogens across global soils”的研究,发现土壤微生物多样性与病原体流行率在全球呈负相关,并揭示病原体丰度与致病力及全球死亡率模式显著相关。在全球变化情景下,多数优势病原体比例可能上升。研究还绘制了全球土壤主要人类病原体分布图,阐明其生物地理与生态特征,为制定监测与风险管理策略、降低疫情暴发风险提供依据。
这意味着,在肠道菌群检测中发现的某些异常或致病菌,并不一定源于短期感染,而很可能是长期环境暴露累积的结果。因此,病原菌的控制不能仅依赖益生菌调节或抗生素干预,更重要的是减少其从环境进入人体的路径。
如果肠道检测报告中出现如沙门氏菌、致病性大肠杆菌、类鼻疽杆菌、克雷伯氏菌等,应重点考虑其环境来源。土壤是这些病原体的重要储存库,日常园艺、农作活动或儿童玩土等行为,都可能在无意识中增加暴露风险。特别是在潮湿或热带地区,这类病原体更易长期存活并富集。
农产品则是连接土壤与人体的重要媒介。叶菜类直接接触土壤,根茎类附着土壤较多,而水果也可能因灌溉水或土壤飞溅受到污染。如果种植过程中使用未经充分处理的粪肥,或灌溉水源受到污染,再加上洪水或暴雨等极端气候事件导致土壤扰动,都会显著增加农产品携带病原体的风险。此外,动物粪便通过土壤进入食物链,或宠物将病原体带入家庭环境,也构成重要的传播路径。
值得特别注意的是,病原体具有明显的地区性与季节性特征。不同地区的土壤病原谱差异显著,例如热带地区更易出现类鼻疽杆菌等环境致病菌,而干旱地区则更利于孢子类病原体的长期存在。同样,季节变化也会影响病原体丰度,雨季和洪水之后往往出现显著上升,高温条件促进细菌繁殖,这些都直接影响人群暴露风险。
▸ 土壤中的人类细菌病原体
一项覆盖59个国家、1602个土壤宏基因组的全球研究,为我们揭示了土壤中人类细菌病原体的分布模式。
研究中样本地点的全球分布
Xiong C,et al.Cell Host Microbe.2026
研究人员共鉴定出80个被归类为潜在土壤栖息人类病原体的细菌分类群,包括类鼻疽假单胞菌(Burkholderia pseudomallei)、结核分歧杆菌复合群(mycobacterium tuberculosis complex)、铜绿假单胞菌(Pseudomonas aeruginosa)、肠沙门氏菌(Salmonella enterica)、克雷伯氏菌(Klebsiella spp.)和志贺氏菌(Shigella spp.)等。
• 优势病原体主导模式
在这80种病原体中,25种被确定为优势病原体—它们不仅广泛存在(出现在≥80%的样本中),而且在病原体群落中表现出较高的相对丰度。
令人惊讶的是,这25种优势病原体仅占所有病原分类群的31.3%,却贡献了总病原体序列的90.8%。这种”少数主导”的模式与土壤中优势细菌和真菌的分布规律一致,反映了微生物群落结构的普遍特征。这些优势致病类群属于23种病原体,分布在19个属中,如伯克霍尔德氏菌属(Burkholderia)、分支杆菌属(Mycobacterium)、诺卡氏菌属(Nocardia)、假单胞菌属(Pseudomonas)、沙门氏菌属(Salmonella)和克雷伯氏菌属(Klebsiella)等。
▸ 高致病性优势病原体的健康威胁
在这23种显性病原体中,有11种被列为每年导致770万人死亡的33种人类细菌病原体之首,包括铜绿假单胞菌、肺炎克雷伯菌、肠道沙门氏菌、大肠杆菌、鲍曼不动杆菌、军团菌属、沙雷氏菌属和气单胞菌属等。
• 结核分枝杆菌每年导致大量感染且可在土壤中存活
其中,结核分枝杆菌尤为引人注目,其每年可导致约1060万人感染和160万人死亡。研究发现其成员能够感染各种家养和野生哺乳动物,并能在土壤中以毒力形式存活和增殖,使用变形虫和野生动物等替代宿主维持生存。
• 麻风分枝杆菌、淋病奈瑟菌也能在土壤中存在
值得注意的是,一些传统上不被认为是土壤传播的病原体(如结核分枝杆菌、麻风分枝杆菌和淋病奈瑟菌)也在土壤中被检测到。虽然它们从土壤到人类的传播途径尚不清楚,但最新研究发现蚊子可能是溃疡分枝杆菌(M. ulcerans)的新传播途径,这提示我们许多病原体的传播机制仍有待探索。
这些发现强调了重新关注病原体在土壤中的存活机制及其向人类传播途径的重要性,这对于有效监测和风险管理至关重要。
▸ 病原体的全球分布
通过对21个陆地生物群落的分析,研究发现了人类病原体在不同气候和植被类型下的分布模式。数据显示,主要人类病原体的相对丰度在热带和寒冷农田、温带湿地、温带农田以及热带和温带森林中最高。
进一步分析发现,农田、湿地和森林生态系统,特别是在热带和温带地区,表现出最高的优势病原体相对丰度。而在热带和干旱农田中,人类病原体的多样性最为丰富。
• 热带地区病原体多样性和患病率最高
分布模式与基于流行病学数据的临床研究结果一致——热带地区人类病原体的多样性和患病率最高。例如,东南亚(热带地区)报告了大多数结核病(由结核分枝杆菌引起)和麻风病(由麻风分枝杆菌引起)病例。
为探究环境因素对优势人类病原体全球分布的影响,研究人员通过随机森林和相关性分析发现:年均降水量(MAP)、年均温度(MAT)、降水季节性(PSEA)及土壤pH是最关键因素;此外,海拔、土壤质地、有机碳、土壤生物多样性(含微生物物种与功能基因多样性)及人口密度也具有重要作用。
全球土壤中主要人类细菌病原体的环境驱动因素
编辑
Xiong C,et al.Cell Host Microbe.2026
1
降雨与土壤病原体丰度正相关
• 降雨能够增加病原体在土壤中的分布
研究结果显示,降雨与23种主要病原体中的19种(约82.6%)相对丰度显著正相关。类鼻疽杆菌(B.pseudomallei)在潮湿土壤中生长最好,类鼻疽病例的增加与异常强降雨事件有关。
降雨增加可以提高土壤孔隙水含量,促进病原体的运动,增强其活性和流行性,从而促进其在土壤中的分布。
• 植物覆盖率和生产力也影响病原体丰度
植物覆盖率和生产力与病原体丰度同样呈正相关,这可能反映了植物驱动的土壤有机输入和水分稳定性增加,为某些病原体分类群的持久性提供了有利条件。
相比之下,降水季节性(23种病原体中的19种)、海拔(16种)和土壤pH值(14种)与这些分类群呈负相关。
全球不同生态系统中主要人类病原体的分布模式
编辑
Xiong C,et al.Cell Host Microbe.2026
2
土壤pH值与病原体呈负相关
土壤pH值与最主要的病原体呈负相关,表明酸性土壤往往含有更高的病原体丰度。
• 酸性土壤会破坏原有微生物结构,增加病原体增殖
这与最近的研究证据一致——土壤酸化会改变微生物群落结构,破坏关键的微生物功能,从而削弱微生物组限制病原体增殖的能力。
分析还揭示了降雨和土壤pH值之间存在显著的关系,这意味着气候变化下一些地区的降水增加可能会通过提供最佳水分条件和进一步酸化土壤来促进病原体的丰度。同样,不可持续的农业实践(如过度施肥)会加速土壤酸化,创造有利于人类病原体扩散的条件。
3
温度升高:病原体扩散的”催化剂”
温度与最主要的人类病原体(包括洋葱伯克霍尔德菌群(Burkholderia cepaciaComplex)、结核分枝杆菌复合体和炭疽杆菌)的相对丰度呈正相关,这表明全球变暖可能会进一步增加全球土壤中人类病原体的流行率。
这一发现说明气候变化可能会加剧人类致病性疾病,并表明在未来的气候情景下,降雨量和温度增加的地区可能成为人类细菌病原体的”热点”,进一步增加暴露、感染和死亡的风险。
除主要病原体外,研究还确定了其他8种病原体的环境驱动因素,包括柠檬酸杆菌属、志贺氏菌属、嗜肺军团菌、屎肠球菌、蜡样芽孢杆菌和问号钩端螺旋体等。这些病原体在降雨、温度和土壤特性方面与主要病原体具有相似的生态偏好。这些关于病原体当前分布和环境偏好的研究结果可以作为监测未来流行和爆发的基线数据,例如在筛查伯克霍尔德菌潜在爆发时,应优先考虑高降雨地区。
土壤微生物组多样性与病原体流行的关系是本研究的核心发现。研究基于宏基因组数据评估微生物物种多样性及功能多样性,并通过相关性与结构方程模型(SEM)分析其与人类病原体的关联;同时结合扩增子测序确定细菌和真菌多样性,并在全球200个土壤样本中加以验证。
▸ 微生物多样性与病原体丰度负相关
相关性分析显示,微生物物种多样性和功能多样性与大多数显性病原体的相对丰度呈显著负相关,包括类鼻疽杆菌、结核分枝杆菌复合物、炭疽杆菌、大肠杆菌和肠道沙门氏菌等。
• 土壤中细菌和真菌的多样性有助于减少病原体
在23种主要病原体中,15种和14种病原体分别与微生物种类和功能多样性呈显著负相关。研究还发现,与农业土壤相比,天然土壤中土壤微生物组多样性与主要人类病原体的相对丰度之间存在更强的负相关关系。
土壤微生物多样性决定主要人类病原体的全球分布
编辑
Xiong C,et al.Cell Host Microbe.2026
SEM分析进一步表明,土壤微生物多样性与优势人类病原体的相对丰度呈显著负相关。全球200个土壤样本亦证实:细菌和真菌多样性及细菌丰度均与主要病原体显著负相关。该结果拓展了以往土壤微观实验结论,表明提高微生物多样性可能抑制植物和人类病原体(如大肠杆菌O157:H7和肠道沙门菌)的增殖。
小编解释
较高的微生物多样性通过增加竞争者、耐压型和遗传策略类群,加剧竞争、扩大生态位占用并提升功能冗余,从而抑制病原体建立;这突显了保护土壤生物多样性对土壤、环境和人类健康的重要性。
为验证已鉴定的病原体与疾病毒力之间的关联,评估这些生物体的致病潜力,研究分析了病原体相对丰度与致病特征之间的关系。
• 土壤主要病原体丰度至少关联一种人类疾病特征
结果显示,23种主要病原体中有18种(包括类鼻疽杆菌、结核分枝杆菌、铜绿假单胞菌、鲍曼不动杆菌和大肠杆菌)以及一些其他重要病原体(如柠檬酸杆菌、嗜肺军团菌、伯氏考克斯氏体和蜡样芽孢杆菌)等,其相对丰度均与至少一种与人类疾病密切相关的关键致病特征显著正相关。
这些致病特征包括所有细菌病原体的毒力基因,根据其致病性分为不同的功能组,如毒素合酶、细胞毒性和毒力活性等。
人类细菌病原体与致病特征的关系
编辑
Xiong C,et al.Cell Host Microbe.2026
▸ 毒力因子与抗生素耐药基因
研究使用三个单独的数据库(PHI、VFDB和KEGG)进一步鉴定了与这些病原体相关的毒力因子,并使用DeepARG鉴定了抗生素耐药基因(ARG)。
• 土壤病原体相对丰度影响毒力因子与耐药性
分析表明,在全球范围内,显性病原体(类鼻疽杆菌、结核分枝杆菌、铜绿假单胞菌和鲍曼不动杆菌)的相对丰度与其相关毒力因子和抗生素耐药性之间存在很强的正相关关系。
这些发现进一步支持了识别人类病原体方法的稳健性,并证实了土壤中检测到的病原体可能会导致严重的疾病和死亡。
宏基因组揭示潜在病原体及其致病特征
为从全基因组层面验证宏基因组分箱识别显性病原体的可靠性,研究筛选出7个高质量(完整性≥90%、污染≤5%)MAG作为潜在病原体,其全球分布与定制数据库结果一致,且相对丰度与毒素合成和毒力活性等关键致病特征呈正相关。
• 宏基因组方法有助于识别土壤病原体
其中两个高质量MAG(T073.8和SRR8879131.4)与分枝杆菌的平均核苷酸同一性(ANI)达83%–84%,被认定为潜在重要病原体,并与温度和降雨量呈正相关。
这两者均携带与结核分枝杆菌复合群相关的五类致病特征(毒素合成、细胞毒性、毒力活性、器官损伤和宿主细胞死亡)、抗生素耐药基因(efpA,多重耐药)及外毒素基因(如磷脂酶C、VFC0235)。
结果表明,宏基因组学流程可用于从环境样本中识别潜在新兴病原体。
研究进一步评估了土壤人类病原体分布与全球相关死亡的关系。基于既往研究和世卫组织数据,汇总204个国家和地区的死亡率,并在国家尺度匹配到53个国家的数据。
• 土壤病原体分布与相关疾病死亡率相关
结果显示,麻风分枝杆菌(r=0.51,p=8.3×10^-5)和结核分枝杆菌复合物(r=0.47,p=0.0004)的相对丰度与病原体相关的全球死亡率(或感染病例)显著相关。
此外,细菌病原体相关死亡率与致病特征亦呈显著或接近显著相关,包括毒素合酶(r=0.45,p=0.0006)和毒力活性(r=0.25,p=0.07)。这些结果表明,土壤中人类病原体的流行可能与人类健康密切相关,提示土壤或为其天然宿主。
▸ 病原体的双向传播:土壤⇌人类
土壤与人类之间的病原体传播可能是双向的。一方面,土壤作为天然宿主,病原体可能通过各种途径感染人类;另一方面,人类病原体也可能通过空气、水道或农业实践(如施肥)等生物和非生物媒介从受感染的人群沉积或传播到自然和农业系统中。
• 土壤病原体多处于休眠状态,条件适宜时可经农产品等传播
传播到土壤中的病原体可能以低丰度或休眠孢子的形式存在,在土壤环境中找到替代宿主以生存和增殖;一旦满足传播条件,它们可能通过农产品、野生动物、病媒和城市扩张等各种传播途径重新进入人群,构成健康风险。
研究结果强调,在评估和管理与人类细菌病原体相关的风险时,需要明确考虑土壤因素。如果在地方和区域范围内得到证实,监测栖息在土壤中的人类病原体的流行情况可以为追踪全球疾病负担提供信息,简化流行病学监测,并有助于识别传染病热点。
研究局限性
疾病结果受到许多因素的影响,如人口密度、国家发展水平、社会经济状况和区域医疗质量等,在制定公共卫生政策时也应考虑这些因素。本研究所代表的国家数量有限可能会限制观察;随着数据库的改进,临床结果的预测能力也可能提高。
此外,一些病原体(如肠沙门氏菌和单核细胞增生李斯特菌)通过生食感染人类的途径已经确立,但其他病原体(如结核分枝杆菌)从土壤传播给人类的途径仍然难以捉摸。
基于环境变量(如气候和土壤因素)与人类病原体相对丰度的显著相关性,研究绘制了其在全球土壤中的当前及未来分布,模型可解释58%–88%的空间变异。
结果显示,总体显性病原体、特定病原体(如类鼻疽杆菌和结核分枝杆菌复合群)及关键致病功能(毒素合成、毒力活性和细胞毒性)在撒哈拉以南非洲、南美和东南亚等地区呈高丰度分布。
▸ 预测地图的验证及其应用价值
预测的结核病综合征全球地图显示了与世界卫生组织估计的全球结核病地图可比的模式——大多数结核病病例发生在东南亚、西太平洋和非洲。
• 病原菌分布与其致病人群分布相似
同样,预测的类鼻疽杆菌全球分布图与基于人类和动物感染病例的假鼻锤杆菌全球分布模式一致,类鼻疽在东南亚和南亚、澳大利亚北部、太平洋和印度洋岛国、撒哈拉以南非洲以及中南美洲的许多热带地区高度流行。这些结果为研究方法的稳健性提供了额外支持。
编辑
Xiong C,et al.Cell Host Microbe.2026
值得注意的是,在干旱地区(包括北非、西亚、澳大利亚北部和中部以及美国西部)发现了病原菌多药耐药诺卡菌的相对丰度最高。这与美国诺卡氏菌感染人数在西南部干燥温暖气候中最高的报告相吻合,表明不同病原体对特定气候条件的适应性。
▸ 气候变化下的病原体分布预测
在持续的气候变化下,降水模式和温度正在发生变化,这可能会对人类病原体的分布产生深远影响。
• 未来一些病原体和致病特征可能呈上升趋势
研究分析了病原体相对丰度从当前气候情景到预测的未来气候情景的潜在变化,结果表明在未来的气候情景下,一些关键病原体和致病特征的比例在全球大多数地区呈上升趋势。
例如,结核分枝杆菌复合物和致病群毒素合酶在撒哈拉以南非洲、南美洲、西欧、南亚和东南亚的某些地区呈现出明显的增长趋势。这与最近关于环境中人类病原体丰度总体增加的报告相一致。
这些地图提供了全球主要人类病原体的空间定量信息,填补了关于生活在土壤中的人类病原体的全球分布和环境偏好的关键知识空白。
然而,随着未来气候变化情景下土壤微生物组多样性的预测数据可用,以及更多宏基因组序列(特别是来自采样中代表性较低的地区/国家,如非洲国家)的积累,预测模型可以进一步改进。
总体而言,全球研究揭示了土壤中人类病原体分布的几个关键发现:主要栖息在土壤中的人类病原体的全球分布由气候条件和土壤生物多样性决定,在更潮湿的环境中观察到相对丰度更高。
土壤微生物多样性与这些病原体的流行率(即相对丰度)呈负相关,表明土壤生物多样性在最大限度地降低人类病原体爆发风险方面发挥着关键作用。
这些结果共同强调了土壤生物多样性是一个潜在的重要生态因素,它塑造了栖息在土壤中的人类细菌病原体的全球生物地理学。
▸ 研究的关键启示
这项研究确定了广泛分布在各种生态系统类型中的主要病原体,并揭示了这些病原体的相对丰度与传染病的致病特征和全球死亡率之间的正相关关系。此外,研究展示了主要病原体的环境偏好,并预测了未来全球变化可能如何影响其空间分布。这些发现对未来的研究重点和感染风险的管理具有重要意义:
1.病原体传播途径再评估:多种主要病原体(如类鼻疽杆菌、沙门氏菌和炭疽杆菌)已知可通过环境(如农产品、动物媒介和尘埃)传播,而结核分枝杆菌复合体等则传统上被认为仅经人际传播。研究表明这些病原体可在土壤中长期存活,未来应重点开展与风险管理相关的研究,如其在土壤中的存活与分布机制,以及潜在的土壤—人类传播新途径。
2.健康风险预警与管理:如果土壤中病原体的相对丰度与当地感染率之间具有稳定关系,就可以用于预测特定环境条件下的疾病风险,例如洪水或强降雨后类鼻疽的发生概率。通过持续监测土壤病原体分布与微生物多样性,并结合临床数据,有望建立更加精准和动态的疾病预警体系。
3.综合方法应对多重社会挑战:将气候、土壤与社会经济因素纳入同一分析框架,有助于提升人类病原体风险评估的系统性与前瞻性。相关研究已弥补了关键病原体在全球分布及其与生物多样性关系方面的认知空白,为预测不同气候情景下的人群健康风险提供了重要依据。
从健康管理角度看,对检测结果的理解也需要升级。肠道菌群检测不应只关注“缺乏哪些有益菌”,更应关注是否存在环境来源的病原体,以及这些菌是否反复出现。如果某类病原体持续存在,更可能提示持续暴露,而非单纯治疗不足。因此,定期监测趋势并结合生活环境变化进行分析,比单次检测更具意义。
在更宏观层面,未来公共卫生管理需要加强对土壤微生物的系统性监测,例如建立区域性的土壤微生物数据库与风险地图,对高风险区域进行预警,并在农业生产中规范粪肥处理和灌溉水管理。同时,在城市规划和灾害管理中,应将洪水后土壤病原风险纳入评估体系。
总体来看,对病原菌的控制应从“治疗导向”转向“源头管理”。环境中的土壤是一个关键但长期被忽视的源头,真正有效的健康策略应覆盖三个层面:上游减少环境暴露,中游控制食物污染,下游调节肠道生态。只有在这一整体框架下,才能更有效地降低感染风险并实现长期健康维护。
参考文献:
Xiong C, Delgado-Baquerizo M, Liang J, Wang J, Yan Z, Jensen SO, Gao M, Sáez-Sandino T, Guirado E, Muñoz-Rojas M, Román R, Maestre FT, Singh BK. Soil microbial diversity associates with lower prevalence of human bacterial pathogens across global soils. Cell Host Microbe. 2026 Mar 31:S1931-3128(26)00119-8.
谷禾健康
最近许多人开始关注一种细菌——Catabacter hongkongensis(香港过氧化氢酶杆菌),它通常以低丰度出现在人体肠道,但有一些病例报告显示其可能在黏膜屏障破损、免疫力下降等情况下带来机会性感染的风险。
该菌是少数由中国科学家2007年首次发现并命名的肠道细菌,它为何直到2007年才被发现?这反映了微生物分类研究的普遍规律:许多常见肠道细菌早已被认识,而如今更多发现的是低丰度、难以培养的罕见菌,需要借助现代分子生物学技术才能检测并分离培养。随着培养与测序技术不断进步,未来还会有更多类似的新物种被发现;香港过氧化氢酶杆菌正是其中的代表。
Catabacter hongkongensis是一种革兰阳性厌氧球杆菌。其最特别的一点是,它属于严格厌氧但又具有过氧化氢酶活性。这种特性有助于它在肠道黏膜表层的环境中存活并可能适应低氧状态,同时抵御潜在的氧化损伤,从而在特定生态位中维持生存与繁殖。
理解Catabacter hongkongensis的关键特征,有助于把握它在肠道中的“角色定位”。接下来,本文将围绕其基本属性、可能的临床相关性以及目前的研究发现,带你了解这一微生物。
Catabacter hongkongensis,中文译为香港过氧化氢酶杆菌,也可译为香港卡塔杆菌,是近年才被科学描述的一种新物种,种加词“hongkongensis”意为纪念其首次分离发现的地点——中国香港。该物种不仅代表一个新物种,也对应一个新属——Catabacter属;截至目前,该属下仅有这一种有效物种。它也是少数由中国科学家首次发现并命名的肠道细菌。
注:也有研究者认为,Catabacter是由Christensenella分化形成的多系群;基于二者的进化关系,他们提出将Catabacter hongkongensis归并为Christensenella属,并命名为 Christensenella hongkongensis。
Catabacter hongkongensis的特殊之处恰恰在于: 它是一种严格厌氧菌,却罕见地表现为过氧化氢酶阳性,这在厌氧菌中是非常少见的例外,也是它名字中“过氧化氢酶(Catabacter)”的由来。
很多人会好奇,肠道细菌有成千上万种,为什么我们要特别介绍这种罕见菌?原因是它是一种机会性致病菌,在特定条件下可导致严重败血症,病死率约50%。因此,了解它对临床诊断与治疗都十分关键。随着谷禾检测样本量的增大,更多人会在检测报告中看到它,因而需要进行科学解读。
◮ 属于厚壁菌门下梭菌目
在分类学上,香港过氧化氢酶杆菌隶属厚壁菌门(Firmicutes)、梭菌目(Clostridiales)、Catabacteraceae科,Catabacter属。该属为新建立属,分类地位相对独特,近缘属较少,提示其进化上也较为独立。
(注:分类地位目前仍有争议,详见后文说明)
尽管它最初是从血液标本中分离发现的,后续分子生态学研究表明,它实际上天然存在于人类肠道中,是肠道菌群中较罕见的成员。健康人粪便中可检测到其DNA,但丰度通常很低。因此,它本质上是肠道细菌:多数情况下长期以低丰度存在,只有在特定条件下才可能引发感染。
从进化关系看,它位于梭菌目较独立的分支,与其他已知梭菌属物种亲缘关系较远。基于这种差异,分类学家为其建立了独立的新属新种。其独特分类地位也对应其特殊生物学特征,例如过氧化氢酶阳性在厌氧菌中并不常见,而它恰是其中的例外。
Catabacter hongkongensis是一种革兰阳性厌氧过氧化氢酶阳性的球杆菌。
香港过氧化氢酶杆菌的生物学特性体现了其对肠道环境的适应,也决定了其分类鉴定上的一些特点。理解这些特性,有助于解释它为何能在肠道中定植,以及为何在特定条件下可能致病。
其一大特点是:它是严格厌氧菌,却呈过氧化氢酶阳性。严格厌氧通常对氧气十分敏感,接触氧气易死亡;而过氧化氢酶可分解氧气代谢产生的过氧化氢,使其具备一定的抗氧能力。看似矛盾,实则对应其生存环境:结肠整体厌氧,但偶有少量氧气渗入;过氧化氢酶帮助其抵御氧化损伤,是长期进化适应的结果。
1
形态
从形态上看,香港过氧化氢酶杆菌是一种球杆菌,也就是形状介于球菌和杆菌之间,球形到短杆形,大小约0.5-1.2×1.0-3.0μm。
运动性:它具有周生鞭毛,因此能够运动,这一点和许多肠道杆菌类似。
Catabacter hongkongensis
编辑
doi: 10.1128/JCM.01831-06.
孢子:它不产生芽孢,因此对高温和恶劣环境抵抗力不强,这一点和其他不产芽孢肠道细菌一致。
2
染色特性
从染色特性看,它为革兰染色阳性:细胞壁具有典型的厚肽聚糖层,染色后可保留紫色。该特征在分类鉴定中很关键,有助于与革兰阴性的肠道致病菌区分。
血液培养抹片显示革兰氏阳性杆状(红色箭头)
编辑
doi: 10.1016/j.idcr.2023.e01797.
3
生长特性
从生长特性看,它是严格厌氧菌,必须在无氧环境下生长;在有氧条件下不能存活。与此同时,它能产生过氧化氢酶,可将过氧化氢(H₂O₂)分解为水和氧气,从而消除由氧代谢产生的这种毒性物质,因此对氧气的耐受性相对其他严格厌氧菌更强。也正因如此,它能够在氧分压稍高的环境中生存,例如肠道黏膜表面附近——这里会有少量氧气从组织扩散进入。
4
代谢能力
从生化反应看,香港过氧化氢酶杆菌具有几个关键特征:其过氧化氢酶阳性是最重要的生化标志,也正是中文“过氧化氢酶杆菌”的命名来源。
其吲哚试验阴性、硝酸盐还原试验阴性;可发酵阿拉伯糖、葡萄糖、甘露糖和木糖产生酸,但不产气。
5
环境适应力
其最佳生长温度为37°C,与人体环境相近。由于不产芽孢,它对热、干燥和消毒剂的耐受力较弱;因此与其他不产芽孢的肠道细菌一样,充分加热即可有效杀灭它。
总结来说,香港过氧化氢酶杆菌的基本生物学特性可概括为:革兰阳性、严格厌氧、过氧化氢酶阳性、能运动、不产芽孢的球杆菌。
这些特征反映了它对人类肠道环境的长期适应,其中过氧化氢酶阳性最为独特,帮助其抵抗氧化损伤并适应肠道条件。了解这些基础后,下一章将重点讨论它的代谢特征,并进一步说明厌氧菌为何会进化出过氧化氢酶活性。
过氧化氢酶活性在兼性厌氧菌和好氧菌中较常见,因为它们需分解代谢过程中产生的过氧化氢毒性。但是香港过氧化氢酶杆菌是严格厌氧菌,为什么还需要过氧化氢酶呢?这个问题其实反映了它对肠道特殊环境的进化适应:结肠虽以厌氧为主,仍可能有少量氧与过氧化物形成,而过氧化氢酶对其生存具有关键意义。
结肠虽然以厌氧环境为主,但仍存在一定量的活性氧
要理解其作用,首先需弄清肠道过氧化氢的来源。过氧化氢主要来自:宿主细胞呼吸产生的活性氧、宿主免疫细胞“呼吸暴发”产生的过氧化氢,以及肠道细菌代谢产生的部分活性氧。
尽管结肠以厌氧环境为主,氧气仍可从黏膜组织微量渗入,同时免疫细胞活化也会带来活性氧。因此,即便是严格厌氧菌,也必须具备一定的抗氧化损伤能力,而过氧化氢酶正是用来分解过氧化氢、降低其毒性。
为减轻氧化损伤,适应进化出过氧化氢酶
香港过氧化氢酶杆菌的过氧化氢酶阳性,是进化适应的结果。它主要定植在肠道黏膜表面附近,这个位置离组织近,氧气渗入比肠腔更多,过氧化氢浓度也更高,因此需要过氧化氢酶来分解过氧化氢,保护自己免受氧化损伤。
如果没有过氧化氢酶,它就无法在黏膜表面生存,只能在肠腔深处生存。因此,过氧化氢酶活性实际上扩展了它的生态位,让它能够定植在黏膜表面,这就是为什么严格厌氧菌还需要过氧化氢酶的原因。
能够代谢多种碳水化合物并产生有机酸
它是严格厌氧菌,能量代谢主要通过发酵途径产生ATP,不能进行有氧呼吸。
从碳水化合物代谢看,香港过氧化氢酶杆菌能发酵多种碳水化合物并产酸,如阿拉伯糖、葡萄糖、甘露糖和木糖等,表明其可利用多样化的膳食碳水化合物获取能量、适应肠道环境。其发酵主要生成有机酸,且不产生大量气体。
过氧化氢酶还有助于分解毒性物质,增强抵抗力
过氧化氢酶活性还可能带来另一重益处:当宿主免疫细胞产生活性氧以杀菌时,过氧化氢酶可帮助细菌分解这些毒性物质,从而增强其对免疫攻击的抵抗力。由此可能提升其在炎症环境中的生存与侵入能力,尤其当肠道黏膜受炎症损伤时更为有利。
从生态代谢理论看,这一代谢特征对应其生态位:低丰度、黏膜表面定植,并需抵抗微量氧与活性氧。过氧化氢酶正好满足这些需求,因此被自然选择保留下来。
本节小结
香港过氧化氢酶杆菌(C.hongkongensis)虽然是严格厌氧菌,但它需要过氧化氢酶来抵抗黏膜表面微量氧气和活性氧造成的氧化损伤,这是对它特殊生态位的进化适应。这种适应让它能够定植在其他厌氧菌不能很好生存的位置,扩大了自己的生态位。
在理解了这些代谢特征之后,我们接下来讨论它在肠道中的分布情况,并进一步分析其在不同肠道环境中出现和维持的定植规律。
可定植于人体肠道,丰度一般较低
香港过氧化氢酶杆菌天然存在于人体肠道,是肠道菌群的成员之一,但因其毕竟罕见、丰度通常很低,长期未被科学家发现。它主要定植于结肠,尤其是黏膜表层,这与其过氧化氢酶阳性的特性相符:黏膜表层氧分压略高,需要过氧化氢酶来抵御氧化损伤。
分子生态学研究表明,健康人肠道中也可检测到该菌DNA,证实其为天然共生菌,而非外源性致病菌。由于丰度较低,通常占总菌群不到0.1%。它属于条件致病菌:在正常情况下与宿主共处,只有在特定条件下才可能引发感染。
哪些因素会影响它的丰度呢?
研究发现,剖腹产分娩的儿童肠道中香港过氧化氢酶杆菌丰度显著高于顺产儿童,具体原因还不清楚,可能和分娩过程菌群定植顺序改变有关。
编辑
影响因子:4.123
另外,帕金森病患者肠道中它的丰度也显著升高,但是否和帕金森病发病有关目前还不清楚,只是相关性,不能确定因果关系。
定植过程及影响因素
它的定植过程与大多数肠道细菌相似:经口摄入后,随食物从胃进入结肠,并在结肠黏膜表面找到合适的生态位而定植。由于其过氧化氢酶阳性,能够耐受黏膜表层的低氧环境,因此更倾向于在该位置定植。
影响其定植的因素主要包括:
1.正常菌群的定植抵抗——若菌群完整,它难以过度生长;
2.饮食因素——其可利用多种碳水化合物,膳食纤维丰富的饮食可能有助于其以低丰度持续存在;
3.以及黏膜屏障完整性——屏障完整时,它难以侵入深层组织并进入血流。
它的携带状态可以持续很长时间,健康人可以长期低丰度携带不发病,这就是它和宿主共生的状态。只有当黏膜屏障破坏,比如患有结肠癌,肿瘤表面溃疡破裂,细菌就可以侵入血流引起感染。
目前对香港过氧化氢酶杆菌(C.hongkongensis)的生理功能研究还很少,绝大多数健康人都低丰度携带,没有明显症状,因此很难研究它对宿主的生理贡献。基于目前的证据,我们可以给出以下结论:
C.hongkongensis一般处于低丰度,对宿主没有影响
首先,香港过氧化氢酶杆菌是人类肠道正常菌群中的罕见成员。以低丰度方式长期携带时,对宿主通常没有明显危害,也缺乏证据表明其具有特殊的有益作用。总体而言,它属于共生菌,在肠道生态系统中占据一个较小的生态位,对整体功能影响有限。
那么,它为何能在肠道中长期存在?关键在于它占据了其他细菌难以充分利用的生态位,同时对宿主缺乏明显危害,因此自然选择难以将其淘汰。由此,它得以持续存在于人类肠道,这也是许多低丰度肠道细菌普遍的生存方式。
可能代谢过氧化氢并影响肠道微生态
它是否可能对宿主有潜在益处?例如,由于它具有过氧化氢酶,可能分解过氧化氢、降低肠道局部活性氧,从而减轻氧化应激——从机制上看是可能的,但目前缺乏研究证据。虽然它的确可能降低局部氧化压力,但由于丰度很低,其整体作用可忽略不计。
从另一个角度,作为肠道菌群成员,它可能通过增加菌群多样性间接促进生态系统稳定。菌群多样性更高通常有利于维持生态稳定,因此低丰度的多种稀有菌可能共同带来这种间接效应。不过这种贡献并非由单一物种主导,香港过氧化氢酶杆菌的单独作用仍较小。
因其丰度低,对其他菌群的影响有限
香港过氧化氢酶杆菌在健康人肠道中丰度很低,因此与其他细菌的相互作用有限,难以对整体菌群结构造成明显影响。它主要占据结肠黏膜表层这一特定生态位,其他细菌难以充分利用该位置,从而缺乏剧烈的营养竞争,能够与周围菌群和平共处。
注:这一生态位的氧分压相对较高,需要过氧化氢酶才能更好生存。多数严格厌氧菌缺乏过氧化氢酶,难以在此环境下良好生长,因此香港过氧化氢酶杆菌能够在该处建立生态位分化。
只有在菌群失调、其丰度异常升高时,才可能打破平衡并产生影响,但这种情形较少见。
此外,它为过氧化氢酶阳性,可分解过氧化氢生成氧气和水,可能轻微改变局部微环境,从而对周围细菌产生一定作用。但由于其数量较少,整体影响通常很小,一般不会造成实质性改变。
正常菌群可能对其有一定抑制作用
正常菌群会抑制它吗?
答案是会。香港过氧化氢酶杆菌同样受到正常菌群的“定植抵抗”影响:当菌群完整时,它难以过度生长;只有在抗生素等因素破坏正常菌群后,才可能增加其丰度。因此,维持正常菌群完整性有助于维持其低丰度携带状态,避免过度繁殖。
总的来说,香港过氧化氢酶杆菌通过生态位分化实现与其他肠道细菌的和平共处:它占据黏膜表层这一相对竞争较少的区域,能相对稳定地以低丰度存在,从而对整体菌群功能影响有限。这种共存模式构成了它与宿主共生的基础。
香港过氧化氢酶杆菌可归类为机会性致病菌:多数情况下不致病,只有在特定条件下才可能引发感染。主要诱因包括肠道黏膜屏障破坏和宿主免疫力低下。截至目前,全球报道的确诊感染病例绝大多数患者均有明确基础疾病,提示其确属机会性感染。
我们来看看已经报道的感染病例都有哪些基础疾病和临床表现:
1
胃肠道恶性肿瘤
这是最常见的基础疾病,约占报道病例的一半。胃肠道恶性肿瘤(尤其结肠癌)常伴随肿瘤坏死溃疡,导致黏膜屏障破坏。
编辑
从溃疡处进入血液引起菌血症和败血症
香港过氧化氢酶杆菌便可能从溃疡处进入血流,引发菌血症与败血症。已报道的病例中,3位结肠癌患者感染后预后较差,其中2位死亡,提示恶性肿瘤患者感染后的病死率较高。
2
急性阑尾炎
香港过氧化氢酶杆菌可以引起急性坏疽性阑尾炎,这种情况下,细菌从破损的阑尾黏膜侵入血流,引起菌血症。
两位健康年轻人得过急性阑尾炎合并香港过氧化氢酶杆菌感染,手术切除阑尾抗感染治疗后痊愈,说明如果是单纯阑尾炎没有其他基础疾病,预后较好。
3
急性胆囊炎
也有报道显示,急性结石性胆囊炎可导致香港过氧化氢酶杆菌感染:胆囊黏膜受损后细菌进入血流。经抗感染治疗并在手术切除胆囊后痊愈。
感染的临床症状
因此,感染途径很明确:先发生肠道黏膜屏障破损,细菌发生移位进入血流,继而引起菌血症或败血症。绝大多数为内源性感染,即由患者自身肠道携带的细菌侵入血流,而非外源性传播。
临床上常见表现包括发热、寒战以及全身毒血症状;严重时可出现感染性休克。若不及时治疗,病死率较高,总体约50%,主要与患者多合并严重基础疾病(如晚期恶性肿瘤)有关。
总结来说,香港过氧化氢酶杆菌致病需要两个条件:一是肠道黏膜屏障破坏,让细菌能够进入血流;二是宿主免疫力低下,不能清除侵入的细菌。它几乎只在有基础疾病的情况下致病,健康人很少致病。
当你在谷禾肠道微生物检测报告中看到“香港过氧化氢酶杆菌(C.hongkongensis)”,很多人会担心:它是不是致病菌?我是否需要治疗?
单次检出不等于就已经生病。是否需要处理要综合判断其丰度以及是否有相关临床症状。在大多数情况下,如果丰度较低,通常不需要特殊处理。
编辑
我们一般分几种常见情况解读:
情况一
检出极低丰度,没有任何症状
这种情况是最常见的,说明你就是正常低丰度携带者,这是正常情况,不需要任何特殊处理。它本来就是人类肠道罕见共生菌,低丰度携带不发病,放心好了。
情况二
检出低到中等丰度,没有症状
这种情况通常不需要特殊治疗,建议以观察为主并定期复查。保持健康饮食、维持正常菌群完整性,有助于防止其过度生长。
情况三
检出中等至高丰度,没有症状
这种情况需要结合你的基础疾病判断:若你有胃肠道肿瘤、炎症性肠病等,提示黏膜屏障可能受损,应由医生评估是否存在细菌移位风险;若你是健康人、完全无症状,通常可定期复查并观察丰度变化,无需立即治疗。
情况四
检出丰度升高,同时有发热、腹痛等症状
这种情况需要高度警惕,应尽快就医并进一步检查,排除细菌移位及菌血症。若你本身有胃肠道肿瘤、阑尾炎、胆囊炎等基础疾病,更应及时评估。
5
通用预防建议(所有人适用)
预防其实主要就是维持肠道健康:
1.均衡饮食:足够膳食纤维,维持正常菌群平衡;
2.不滥用抗生素:保护你的正常菌群,就是保护你自己;
3.及时治疗胃肠道疾病:保持黏膜屏障完整,减少细菌移位机会;
4.定期体检:有基础疾病定期检查,早期发现问题早期处理。
几个重要原则需要强调:
第一,大多数健康人可低丰度携带、无需治疗。作为机会致病菌,它只有在特定条件下才可能致病,检出并不等同于必须杀菌。
第二,若出现致病,通常属于内源性感染,关键在于黏膜屏障破损后细菌移位进入血流。因此,基础疾病是最重要的风险因素,健康人总体上很少发病。
第三,现有研究仍有限:丰度升高与帕金森病等慢性病目前多为相关,并未证实因果关系。不应仅凭检出就判断其与你的疾病有关。
解读原则总结
低丰度且无症状,正常观察;高丰度且有症状,立即就医;有基础疾病则加强监测。多数情况下,检出本身不会影响健康,无需过度担心。
总的来说,香港过氧化氢酶杆菌(Catabacter hongkongensis)是一种较罕见的机会性致病菌,大多数人都是正常低丰度携带,不会致病,不需要过度担心。
作为一个近年才发现的新物种,它的故事告诉我们,人类肠道微生物组还有很多未知的物种等待发现,即使是低丰度物种,在特定条件下也可能给健康带来影响。随着测序技术进步,越来越多这样的罕见物种会被发现,我们对肠道微生物组的认识会越来越完整。
从目前研究来看,它是人类肠道正常的低丰度共生菌,只有在黏膜屏障破损和免疫力低下情况下才会引起机会性感染,多数感染发生在有严重基础疾病的患者,健康人很少发病。它最特别的生物学特性就是严格厌氧却具有过氧化氢酶活性,这是对黏膜表层低氧环境的适应进化,帮助它抵抗氧化损伤,这个特性让它占据了其他细菌不能很好利用的生态位。
未来研究需要进一步回答几个问题:
香港过氧化氢酶杆菌(Catabacter hongkongensis)的发现也说明,人类对肠道微生物的认知仍在深化。未来仍会有更多新发现,帮助我们更好理解肠道微生态,从而更好地维护健康。
参考文献
Liu X, Sutter JL, de la Cuesta-Zuluaga J, Waters JL, Youngblut ND, Ley RE. Reclassification of Catabacter hongkongensis as Christensenella hongkongensis comb. nov. based on whole genome analysis. Int J Syst Evol Microbiol. 2021 Apr;71(4):004774.
Lau SK, Fan RY, Lo HW, Ng RH, Wong SS, Li IW, Wu AK, Ng KH, Tseung S, Lee RA, Fung KS, Que TL, Yuen KY, Woo PC. High mortality associated with Catabacter hongkongensis bacteremia. J Clin Microbiol. 2012 Jul;50(7):2239-43.
Yang Y, Chen J, Gao H, Cui M, Zhu M, Xiang X, Wang Q. Characterization of the gut microbiota and fecal and blood metabolomes under various factors in urban children from Northwest China. Front Cell Infect Microbiol. 2024 Mar 22;14:1374544.
Itoh N, Akazawa N, Ishibana Y, Murakami H. Peritonitis with bacteremia due to Christensenella hongkongensis identified via ribosomal RNA sequencing in a Japanese patient with advanced colorectal adenocarcinoma: A case report. IDCases. 2023 May 9;32:e01797.
Lau SK, McNabb A, Woo GK, Hoang L, Fung AM, Chung LM, Woo PC, Yuen KY. Catabacter hongkongensis gen. nov., sp. nov., isolated from blood cultures of patients from Hong Kong and Canada. J Clin Microbiol. 2007 Feb;45(2):395-401.
Petrov VA, Saltykova IV, Zhukova IA, Alifirova VM, Zhukova NG, Dorofeeva YB, Tyakht AV, Kovarsky BA, Alekseev DG, Kostryukova ES, Mironova YS, Izhboldina OP, Nikitina MA, Perevozchikova TV, Fait EA, Babenko VV, Vakhitova MT, Govorun VM, Sazonov AE. Analysis of Gut Microbiota in Patients with Parkinson’s Disease. Bull Exp Biol Med. 2017 Apr;162(6):734-737.
Cabrol M, Rammaert B, Plouzeau C, Burucoa C, Pichon M. Phylogeny of Catabacter hongkongensis Strains Responsible for Bacteremia Is Not Associated with Clinical Outcomes or Therapeutic Efficacy. Diseases. 2021 Mar 25;9(2):24.
Mandin V, Corvec S, Chéné AL, Guillouzouic A, Dirou S, Bennouna J, Bémer P, Pons-Tostivint E. A fatal case associated with Catabacter hongkongensis bacteremia in lung cancer patient: A case report. IDCases. 2022 Jun 14;29:e01535.
Kaden R, Thelander M, Engstrand L, Herrmann B. First case of human bacteraemia by Catabacter hongkongensis in Scandinavia. New Microbes New Infect. 2016 Oct 4;15:6-8.
谷禾健康
在当代社会的饮食结构和生活节奏下,腹胀、排气增多以及进食后不适,已经成为越来越高频的人群亚健康反馈。根据以往的经验很多人会把这些情况简单理解为饮食不当、消化不好或肠胃比较敏感,但这样的解释往往只停留在表面。
如今,随着大量的临床研究推动,这类现象其实与肠道内一个重要过程有关——肠道产气。我们吃进去入的食物并不会被完全被身体消化吸收,其中一部分会进入大肠,被肠道菌群进一步分解利用。在这个过程中,微生物会通过发酵产生多种气体,比如氢气、甲烷、二氧化碳等。
在正常情况下,这些气体的产生与排出是一个相对平衡的过程,不会引起明显不适。但当饮食结构、进食速度、压力、疾病状态或肠道菌群组成发生变化时,气体产生和排出平衡就会改变,从而引发腹胀、频繁排气甚至餐后不适等症状。
例如,很多被视为健康的食物,本身恰恰富含可发酵底物,包括豆类中的棉子糖家族低聚糖(RFOs),蔬果和谷物中的果聚糖,以及部分人群无法在小肠充分消化的乳糖。这意味着,这些底物进入不同个体的肠道后,会被不同的菌群结构和代谢通路处理。
因此,从肠道微生态的视角来看,这些日常不适并不只是消化差或吃饭问题,而是身体内部微生物代谢活动的一种外在表现。理解这一点,有助于我们更理性地看待症状,也为通过饮食调整和生活方式干预来改善肠道状态提供了更清晰的方向。
我们先来了解这些常见的核心气体,这也是后续做症状分层和干预判断的基础。
氢气:结肠发酵最典型的气体信号
在肠道主要气体中,氢气(H₂)几乎可以看作结肠发酵最具代表性的代谢信号之一。H₂ 是由结肠细菌对不可消化底物进行代谢后产生的主要气体,而且它仅来源于细菌发酵,并不是宿主自身代谢直接生成的产物。也正因为这一点,H₂ 在理解肠道发酵活跃度时具有很高的指示意义。
在一定条件下,肠道在 24 小时内可产生高达 1 L 的 H₂。到了这个水平,H₂ 已经不只是一个代谢背景值,还可能和腹胀、腹痛、排气增多等症状联系起来。也就是说,H₂ 一方面是正常结肠发酵的组成部分,另一方面也可能成为症状形成的重要推动因素。
哪些菌群参与氢气生成?
从菌群来源看,和 H₂ 生成关系最密切的,主要包括拟杆菌属(Bacteroides)、瘤胃球菌属(Ruminococcus) 、 Roseburia。
此外,Anaerostipes caccae、Clostridium、Eubacterium rectale、Enterococcus、Victivallis vadensis等菌群,也都参与了 H₂ 的生成过程。
人类肠道菌群中存在的主要产气菌
doi.org/10.1016/j.jff.2022.105367
这些菌群有一个共同点:它们能够利用进入结肠、但没有在上消化道被充分处理的底物,尤其是各类可发酵碳水,在厌氧环境中进行分解和发酵。这个过程中,除了生成短链脂肪酸等代谢产物,也会释放出 H₂ 和 CO₂。换句话说,H₂ 的出现,本身就说明结肠内的代谢系统正在运转。
氢气是怎么产生的?
最常见的路径是经典的糖酵解过程(Embden–Meyerhof–Parnas pathway)。肠道细菌将碳水化合物分解为丙酮酸后,会产生大量还原型辅因子,而这些还原力需要被释放和再平衡,这时微生物中的氢化酶(hydrogenases)就会参与进来,推动 H₂ 的形成。
H2还可通过以下机制生成:
1)丙酮酸裂解生成甲酸,随后经甲酸裂解酶代谢;
2)丙酮酸在丙酮酸:铁氧还蛋白氧化还原酶和氢化酶作用下生成H2
所以,H₂ 的生成本质上反映的是肠道厌氧发酵系统在处理底物和转移电子,它是代谢网络维持运行的重要一环。
细菌代谢产生H2、H2S、CH4和CO2的生化途径
编辑
doi.org/10.1016/j.jff.2022.105367
为什么氢气不会一直在肠道里累积?
虽然 H₂ 是主要产气成分之一,但它不会在肠道内无限累积。原因在于,过高的 H₂ 分压会抑制进一步代谢,从热力学上影响细菌继续代谢底物。因此,肠道必须持续把过量 H₂ 移走,整个代谢系统才能维持运行。
肠道中约三分之一的H2被结肠中的其他微生物利用,其余则以肛门排气或呼气形式排出。而承担“耗氢”任务的主要有三类微生物:
这意味着,H₂ 在肠道里更像是一个代谢枢纽。它一头连接上游代谢,一头连接下游的甲烷通路、硫代谢通路和乙酸生成通路。
利用气体的肠道微生物
编辑
doi.org/10.1016/j.jff.2022.105367
氢气升高,通常说明什么?
从功能上看,H₂ 最值得关注的地方,在于它对“代谢负荷”的提示作用。
H₂ 并不只是“会不会胀气”的问题,它更像是一个代谢系统是否处于高负荷状态的功能读数。
也正因为 H₂ 与细菌代谢过程关系非常直接,呼气氢已被广泛用作评估糖类吸收不良和小肠细菌过度生长(SIBO)的重要指标。原因在于,H₂ 直接反映了肠道细菌对未被吸收底物的代谢活动。
二氧化碳:始终处在代谢主通路中
二氧化碳也是结肠代谢的主要气体之一
在讨论肠道产气时,二氧化碳(CO₂)往往没有氢气和甲烷那么受关注,但从代谢过程看,它一直是结肠细菌在结肠中对膳食底物进行代谢代谢时产生的主要气体之一。
和 H₂ 一样,CO₂ 也是菌群处理未被上消化道充分吸收底物后的结果,因此它本身就处在肠道代谢主通路中。
哪些菌群参与了二氧化碳生成?
参与膳食碳水发酵并产生 CO₂ 的菌群,主要仍然集中在厚壁菌门和拟杆菌门两大类群中。
也就是说,CO₂ 的产生与结肠中最主要的发酵菌群密切相关,和 H₂ 的菌群背景有很大重叠。
二氧化碳是怎么产生的?
CO₂ 的产生与结肠发酵中最基础的碳流动和能量代谢过程直接相关。只要结肠内的发酵在持续,CO₂ 就会持续生成。
二氧化碳会如何被处理?
和其他肠道气体相比,CO₂ 的一个重要特点是:相当一部分会被肠黏膜吸收。研究指出,大多数 CO₂ 会经结肠黏膜被动吸收,进入循环后再通过呼吸排出体外。
除此之外,未被吸收的 CO₂ 也可以随排气排出,或者被肠道内其他微生物继续利用。
在后续代谢中,CO₂ 还会继续参与两类重要通路:
所以,CO₂ 在肠道里既是代谢产物,也是后续代谢网络中的重要底物。
二氧化碳升高,通常说明什么?
从肠道代谢角度看,CO₂ 的持续生成说明结肠代谢通路处于活跃状态,尤其与碳水底物的厌氧分解密切相关。它本身虽然不如 H₂ 和 CH₄ 那样常作为单独指标被强调,但在代谢网络中,CO₂ 一直是一个基础节点:
硫化氢:量不大,但值得关注
和 H₂、CO₂、CH₄ 相比,硫化氢(H₂S)在肠道总气体体积中的占比并不高,但它的生物学意义很强。原因在于,H₂S 不只是一个代谢产物,它同时还是一种具有信号作用和细胞效应的含硫小分子。我们来看看,H₂S 来自哪条通路、处在什么部位、达到什么浓度,以及宿主能否把它及时解毒和清除。
人类大肠和粪便中的 H₂S 浓度大约在 0.17–0.38 mmol/L。
哪些菌群参与了硫化氢生成?
肠道内负责生成 H₂S 的核心菌群是硫酸盐还原菌(sulfate-reducing bacteria, SRB)。
其中最常见、最典型的代表是Desulfovibrio piger。此外,Desulfovibrio fairfieldensis、Desulfovibrio desulfuricans、Desulfobulbus、Desulfomicrobium、Desulfomonas 等,也都属于与 H₂S 生成相关的菌群。
SRB 在结肠中的数量范围大约可达 10³–10¹¹ CFU/g 。其中 Desulfovibrio 属是人类结肠中最主要的一类 SRB。
不过,现有研究也提示,肠道 H₂S 的来源并不只有 SRB。Fusobacterium 这类菌同样能够参与 H₂S 生成。
此外,卡拉胶(carrageenan) 等硫酸化多糖也可以提供相关底物。研究还指出,粪便 H₂S 升高与红肉摄入增加存在相关性。
硫化氢是怎么产生的?
最经典的一条路径,是 SRB 在厌氧环境下利用 H₂ 作为电子供体、利用硫酸盐作为末端电子受体,通过异化硫酸盐还原作用,最终生成 H₂S。
换句话说,这条路径本质上是一个典型的耗氢分流过程:上游发酵菌持续产出 H₂,下游 SRB 再把这部分 H₂ 转入硫代谢通路。
另一条重要路径,与含硫氨基酸代谢有关。像 Fusobacterium nucleatum 这类菌通过半胱氨酸脱硫酶将L-半胱氨酸等含硫氨基酸转化为 H₂S、丙酮酸、氨。
也就说,H₂S 的生成至少同时连接了两条线索:
H₂S 的问题,关键在浓度和部位
H₂S 的作用具有明显的浓度依赖性。
研究还表明,正常情况下结肠本身具有相当强的 H₂S 解毒能力,可将 H₂S 氧化为毒性更低的代谢物,例如亚硫酸盐。这意味着,结肠并不是被动暴露于 H₂S,而是长期处在“产生—解毒—利用”之间的动态平衡里。
问题通常出现在两个场景:
一是菌群失衡导致 H₂S 暴露增加;
二是暴露位置前移。
小肠对 H₂S 的解毒能力约只有结肠的 1/20。这意味着,一旦菌群失衡或 SIBO 让 H₂S 暴露更多发生在小肠,同样的 H₂S 负荷,其后果可能就会完全不同。
编辑
doi: 10.3390/ijms2607334
H₂S 为什么更值得放在黏膜环境里理解?
和 H₂、CO₂ 主要反映发酵是否活跃不同,H₂S 更值得放在黏液层—上皮屏障—局部炎症这个框架里理解。
现有研究提示,较高浓度的 H₂S 可抑制线粒体呼吸、影响 ATP 生成,并改变细胞内氧化还原状态;同时,它还会影响黏液层稳定性,增加上皮暴露风险。
——炎症性肠病
研究普遍发现,IBD 患者肠道内 H₂S 暴露增加,SRB 相关菌群也更活跃。IBD 患者结肠腔内 pH 往往高于健康对照,这会为 SRB 提供更有利的生长环境。
与此同时,研究表明,H₂S 还会进一步影响结肠能量代谢。H₂S 可干扰丁酸盐氧化,削弱结肠细胞对丁酸的利用。考虑到丁酸本来就是结肠上皮的重要能量来源,这种变化会让黏膜环境更脆弱,也更容易进入炎症状态。
——结直肠癌
现有研究已经提示,多种 H₂S产生菌 与肿瘤发生发展有关,尤其是 Fusobacterium nucleatum 这类既参与肿瘤微环境、又可参与 H₂S 生成的菌。
H₂S 在肿瘤发生中可能参与多个过程,包括细胞代谢调节、血管生成、细胞周期调控以及 DNA 损伤相关效应。
硫化氢升高,通常说明什么?
从肠道代谢角度看,H₂S 升高通常提示的不是单纯“产气增多”,而是以下几件事可能同时存在:
所以,H₂S 更适合放在“耗氢分流—硫代谢负荷—黏膜环境风险”这条线上看。
氨:常被忽略的蛋白发酵代谢产物
氨主要来自氨基酸脱氨作用
和前面几类气体相比,氨(NH₃)在肠道产气讨论里经常被忽略,但在肠道代谢层面,它同样是一个重要信号。
研究提到,NH₃ 主要由结肠细菌对氨基酸进行脱氨作用后产生。它和 H₂、CO₂、CH₄ 这类主要以气体形式存在的成分不同,NH₃ 在胃肠道内主要溶解于液相环境中。
研究表明,人类粪便中检测到的 NH₃ 浓度大约在 10 – 30 mM,而且随着蛋白质摄入增加,NH₃ 的排泄量也会增加。
氨和哪类底物关系更密切?
如果说 H₂ 和 CO₂ 更直接对应碳水代谢,那么 NH₃ 更直接对应的是蛋白质及氨基酸代谢。它的生成意味着,进入结肠的含氮底物正在被菌群进一步分解。
也就是说,NH₃ 更多反映的是肠道内蛋白发酵这一端的代谢活动。
它不是典型的“排气体积贡献者”,但在结肠代谢环境中,NH₃ 所代表的含氮代谢负荷值得注意。
氨升高后,会对肠道产生什么影响?
NH₃ 可通过改变肠道细胞形态和中间代谢,对细胞产生多方面毒性作用,包括抑制 DNA 生物合成以及缩短细胞寿命。
此外,一些研究还发现,较高水平的 NH₃ 可损伤结肠黏液层,并降低结肠细胞的寿命;在动物研究中,升高的 NH₃ 还与抑制结肠细胞对丁酸的氧化利用有关。
NH₃ 的问题在于它会直接影响结肠上皮细胞所处的代谢环境。
氨升高,通常说明什么?
从肠道代谢角度看,NH₃ 升高通常提示的是蛋白发酵负荷增加,以及结肠内含氮底物代谢活跃。它反映的重点在肠道局部代谢环境是否承受了更高的含氮代谢压力。NH₃ 更适合放在“蛋白发酵—黏膜环境—上皮代谢”这条线上看。
近年的研究还开始把 NH₃ 的意义从肠道局部环境延伸到更广的系统轴线。已有系统综述和 Meta-analysis 提出,肠道内源性 NH₃ 与 H₂S 可能还与男性生殖健康相关。
这项荟萃分析发现,体内氨(NH3)和/或硫化氢(H2S)与对男性生育有益的乳杆菌呈负相关,而氨和硫化氢与对男性生育有负面影响的拟杆菌属呈正相关。对乳杆菌属和拟杆菌属水平与氨进行比较的荟萃分析显示,结果具有统计学意义(p<0.001)。
不过,这部分内容目前可视为前沿方向,而不是已经定论的临床结论。
甲烷:更值得关注的是肠道动力变化
在肠道主要气体中,甲烷(CH₄)的来源和 H₂、CO₂ 不太一样。CH₄ 主要不是由普通细菌直接产生,而是由产甲烷古菌(methanogens)利用 H₂ 作为电子供体,将 CO₂ 还原后生成。
甲烷的出现同时说明肠道内前端已经存在 H₂ 和 CO₂ 的持续生成,并且下游存在活跃的甲烷生成通路。
哪些菌群参与了甲烷生成?
人类胃肠道内最主要的产甲烷微生物属于 Euryarchaeota。其中,最常见、最重要的代表是 Methanobrevibacter smithii。
此外,Methanosphaera stadtmanae 和 Methanobrevibacter oralis 也被认为参与了 CH₄ 的生成。
研究还提到,人体粪便中产甲烷古菌的丰度差异很大,可从几乎检测不到到 10⁹ CFU/g stool 不等;而只有当其数量达到大约 10⁷ 时,呼气中才更容易检测到 CH₄。
甲烷生成会带来什么代谢后果?
甲烷生成有一个很重要的特点:它能够明显减少总气体摩尔数。对应反应为:
CO₂ + 4H₂ → CH₄ + 2H₂O
也就是说,原本的 5 mol 气体,最终会变成 1 mol 气体。从这个角度看,甲烷生成实际上会降低总体气体体积。
甲烷相关问题的重点,往往在于它改变了气体代谢的去向,也改变了肠道内 H₂ 的分流格局。
从机制上看,这是一条非常典型的耗氢通路。
也就是说,上游发酵菌把未被小肠吸收的底物分解后,产生 H₂、CO₂ 和短链脂肪酸;下游产甲烷古菌再把 H₂ 和 CO₂ 进一步转入甲烷通路。
这一点很关键。因为 H₂ 在肠道里并不会无限累积。研究表明,较高的 H₂ 分压会抑制发酵菌继续代谢底物,并影响 NADH 再氧化以及后续发酵过程。换句话说,把 H₂ 持续移走,本身就是维持发酵系统继续运转的一部分。 甲烷生成正是这套移走 H₂的方式之一。
编辑
甲烷和便秘经常一起出现
较高水平的 CH₄ 与肠道动力减慢相关,并且和便秘,尤其是 IBS-C(便秘型肠易激综合征) 的关系更为密切。
一些研究还显示,CH₄ 可增强肠道收缩活动,同时减慢肠内容物推进速度。
也就是说,甲烷相关问题的重点,并不主要体现在总气体体积上,而更多体现在动力学后果上。
甲烷可能不仅影响动力,也和能量提取效率有关
一项研究发现,高甲烷产生者并没有表现出更高的 SRB 或 产乙酸菌活性下降,也就是说,甲烷通路未必是在压制其他耗氢通路;但高甲烷产生者却表现出更高的血清丙酸水平,并且在高纤维、全食物模式饮食下,具有更高的宿主可代谢能量(metabolizable energy, ME)。
进一步的网络分析还发现,和 CH₄ 生成正相关的,不只是 Methanobrevibacter smithii,还包括一组更适合降解膳食纤维、发酵纤维降解产物并生成丙酸的菌群,例如 Bacteroides caccae、Bifidobacterium adolescentis、Coprococcus、Eubacterium、Lachnospira、Prevotella copri、Roseburia faecis 等。
与甲烷产生率呈正相关的微生物
编辑
doi: 10.1093/ismejo/wraf103
这提示,甲烷有时更像是一个微生物协同网络的标志:它背后可能对应的,是一整套更擅长处理纤维底物、维持发酵链条、促进短链脂肪酸生成和吸收的菌群结构。
甲烷升高,通常说明什么?
从肠道代谢角度看,CH₄ 升高通常提示的是:
从实际理解上看,CH₄ 更适合放在“耗氢通路—肠道动力—微生物能量提取效率”这条线上看。提示气体代谢结构和肠道动力状态可能已经发生了变化。
上一章节我们了解到,H₂、CO₂、H₂S、NH₃、CH₄ 这些产物,来源不同、代谢路径不同,对宿主的影响也不同。也正因为如此,临床上看起来都叫“腹胀”“排气多”或“吃完不舒服”,背后的机制并不一定相同。
气体本身只是结果,真正决定症状和结局的,是气体类型、代谢去向以及宿主对这套代谢输出的承接能力。
肠道气体本身并不一定带来症状,关键在于能否被及时清除
肠道菌群发酵产生气体,本身并不等同于一定会出现不适。研究提到,发酵过程中产生的气体主要有三种去路:
一项研究显示,大约 77% 的微生物气体会通过前两种方式被清除,以排气形式离开的约占 23%。
这意味着,对多数健康人来说,产气和清除之间通常可以维持相对稳定的平衡。气体生成本身是结肠发酵的一部分,问题往往出在这套清除机制是否还能及时承接当前的发酵输出。
为什么有些人更容易腹胀、排气多?
主诉频繁腹胀和排气增多的人群,往往存在肠道气体清除受损。也就是说,他们的问题不一定只是产气更多,还可能是气体在肠道内停留得更久、清除得更慢。
另一要点是,功能性胃肠道症状患者对气体负荷的耐受阈值往往更低。
研究提到,这类人群相对正常人可以耐受的气体量,也更容易出现腹胀、胀满感和不适。也就是说,同样的气体负荷,在不同宿主背景下,主观症状的强弱并不一致。
这一点也和近期的干预研究相呼应。
一项随机、双盲、安慰剂对照试验纳入了 350 名自述存在腹胀/消化不良症状的健康成年人,连续 6 周给予多菌株合生元或安慰剂。结果显示,干预组不仅腹胀和胀气评分下降,腹部不适也显著改善,同时便秘相关不适和排便规律性也有所改善。
研究者指出,这类变化可能并不只是来自单纯产气减少,还与胃肠动力改善、内脏高敏感缓解以及肠道屏障功能支持有关。
这种差异在实际菌群报告中也很常见。看起来都属于产气相关问题,但进一步拆开后,背后的代谢结构并不一样。
比如在谷禾的一些样本中,除了主诉腹胀或排气增多之外,还可以直接看到肠道产气本身已处于超标水平;进一步拆开后,又伴随对甲酚过多、丁酸盐不足、Bacteroides fragilis 增殖,以及腹胀相关的 Bacteroides、Clostridium、Proteobacteria 等线索。
编辑
<来源:谷禾肠道菌群检测数据库>
这样的结果提示,问题往往不只是气体多了,而更像是发酵负荷升高、腐败代谢增强、保护性代谢物不足和菌群生态失衡同时存在。也正因为如此,同样表现为腹胀或排气增多,背后的处理逻辑并不一样。
气体的产生位置和产生速度,也会影响症状表现
除了总量和清除能力,气体在肠道内的产生位置和产生速度同样重要。研究指出,肠道内气体的数量或分布位置出现异常,都可能导致不良症状。
例如,当碳水化合物在小肠内被细菌过度发酵时,更容易引起明显的腹胀和腹痛,这也是小肠细菌过度生长相关症状的重要机制之一。
像RFOs(raffinose family oligosaccharides)这类发酵速度较快的底物,更容易因为短时间内迅速产气,而增加肠道清除负担,从而放大腹胀等症状。
注:RFOs是一类由多个单糖(通常是葡萄糖、果糖和半乳糖)通过糖苷键连接而成的低聚糖。在植物中广泛存在,尤其是在豆类、十字花科蔬菜(如卷心菜和花椰菜)、全谷物和某些根茎类蔬菜中。
有些“产气食物”在持续摄入后,症状反而会减轻
研究提出,肠道清除气体的能力并不是固定不变的,而是可以被饮食改变的。
例如,在刚开始摄入GOS这类短链、发酵较快的非消化性碳水时,总气体体积可增加 37%;但在连续摄入两周后,气体体积又会下降回基线水平。与此同时,在到达肛门前就被清除掉的气体比例,还呈现上升趋势。
这说明,持续摄入某些产气性食物后,肠道菌群的耗气能力和宿主对气体的处理能力可能会发生适应。一些所谓“容易产气”的食物,并不一定会长期维持同样强度的不适,症状程度可能随着时间而改变。
在炎症性肠病中,硫化氢相关信号更值得警惕
临床研究和实验研究都提示,菌群产生的 H₂S 与 IBD,尤其是溃疡性结肠炎(UC),存在关联。体外研究发现,UC 患者粪便样本中的硫酸盐还原菌数量高于健康对照,同时 H₂S 生成水平也更高。
还有研究发现,去除富含含硫氨基酸的食物,如 牛奶、鸡蛋和奶酪,在部分溃疡性结肠炎场景中曾显示出一定治疗意义。这提示,H₂S 所对应的也可能反映结肠局部代谢环境的改变。
甲烷菌和硫酸盐还原菌,与结直肠癌有关
多项研究还发现,甲烷菌和硫酸盐还原菌相关通路与结直肠癌(CRC)存在关联。
结直肠癌患者中,CH₄ 排出的发生率高于健康对照;与此同时,较高水平的 H₂S 也出现在结直肠癌高风险人群和溃疡性结肠炎患者中。
还有研究发现,在结直肠癌患者活检组织中,负责 H₂S 解毒的酶硫代硫酸盐硫转移酶丰度较低。这些结果提示,肠道气体及其相关代谢通路的意义,可能已经不只是功能症状层面,还涉及肠道局部病理环境的变化。不过,目前这类关联背后的分子机制仍有待进一步研究。
我们知道导致肠道气体的原因很多,但食物是影响产气症状的主要因素之一。食物之所以会影响肠道产气,关键是其中有哪些成分没有在上消化道被充分消化吸收,最终进入结肠,成为菌群发酵的底物。
与肠道气体关系最密切的食物类型,主要包括豆类、部分蔬菜和水果、全谷物、乳制品。这些食物虽然来源不同,但在机制上有一个共同点:都可能为结肠菌群提供可发酵底物,从而增加气体生成。
豆类——RFOs
豆类,包括干豆、扁豆、豌豆等,是很多人日常饮食中的重要组成部分。它们通常脂肪含量较低,同时富含蛋白质、维生素、矿物质和膳食纤维,因此在营养学上一直被视为具有较高价值的食物。
然而,尽管具有上述优点,许多消费者仍避免食用豆类,尤其是多种菜豆,原因是担心排气过多和胃部不适。
豆类引起的排气增加往往出现在摄入早期
有报道指出,部分人在饮食中加入豆类后,尤其是纤维摄入本就偏低的人,排气增加是预期结果。然而,有报道指出,随着更频繁地摄入豆类,排气会有所减少。
在一项随机对照试验中,50%的健康受试者报告在食用斑豆或烤豆的第一周内排气增加,但第二周后这一比例降至38%。
此后,报告胀气症状的受试者百分比在第6~12周持续下降至15%~23%。
在另一项随机对照试验中,评估了连续28天食用豆类(鹰嘴豆、扁豆和青豆)的影响。在干预早期,食用每种豆类都会引起胀气显著增加,但在后期胀气水平显著下降。
基于以上这些研究,排气的频率取决于个体食用豆类的频率,且个体之间的反应可能存在显著差异。
豆类中的关键底物是 RFOs
研究认为,豆类与肠道气体关系密切,主要与其中较高含量的膳食纤维和RFOs 有关。
研究指出,人类缺乏足够的 α-galactosidase 来降解这类寡糖,因此 RFOs 不能在小肠被充分消化吸收,而会进一步进入结肠,被菌群发酵,并在这一过程中产生气体。也正因为如此,豆类摄入后出现排气增加,在机制上是可以解释的。
不同豆类中的 RFOs 含量存在差异
扁豆、青豆、黄豆、豇豆、红芸豆等都属于 RFOs 含量相对较高的代表,不同种类之间在棉子糖、水苏糖、毛蕊花糖的含量上存在明显差异。
这说明,豆类引起的肠道产气并不是完全一致的,不同品种、不同底物组成,都会影响进入结肠后的发酵负荷。
编辑
加工方式可能影响豆类的产气潜力
除了原料本身的差异,综述还提到,一些加工处理方法可能降低植物中的 RFOs 含量,例如挤压、浸泡、高压灭菌、酶处理、煮沸。这些方法在不同程度上都有助于减少 RFOs,因此也被认为可能降低后续发酵产气。
从应用角度看,这部分研究的意义比较明确:豆类相关问题并不一定只能通过回避摄入来处理,底物含量本身和加工方式同样会影响最终的耐受性表现。
蔬菜和水果:果聚糖和多元醇
食用富含果聚糖的蔬菜后,人体可能会出现肠胃胀气。在蔬菜和水果中,与肠道气体关系更密切的是其中所含的某些可发酵碳水化合物。主要包括两类成分:一类是果聚糖,另一类是多元醇。
蔬菜和水果中的果聚糖属于菊粉型,由一个至多个与蔗糖的果糖部分相连的2→1连接的β-果聚糖基单元组成。此类果聚糖中最简单的物质是1-蔗果三糖,即β-果聚糖基-(2→1)-β-果聚糖基-(2→1)-α-吡喃葡萄糖苷。菊粉型果聚糖的聚合度通常在3~约60之间。
菊粉和低聚果糖(FOS)在蔬菜中含量丰富,如洋蓟、芦笋、菊苣根、大蒜、洋葱、蒲公英叶、韭菜等。
编辑
果聚糖在小肠中无法被消化,在结肠中发酵后产生过多肠道气体
果聚糖不能在小肠被消化吸收,因此会进入结肠,被菌群进一步发酵,从而增加气体生成。
最近的两项研究探讨了食用含菊粉食物对胃肠道症状的影响。排气增加是健康志愿者中最常见的胃肠道症状之一。
两项研究的结果均显示,健康志愿者在食用富含菊粉的饮食后,报告的最常见的胃肠道症状是肠胃气胀加重。
在另一项研究中,据报告,在连续5周食用富含低聚果糖的饮食期间,低聚果糖会导致肠道气体产生增加。
多元醇也是蔬菜和水果中重要的产气相关成分
多元醇天然存在于一些水果和蔬菜中,也被广泛作为无糖甜味剂用于口香糖和饮料中。
FDA批准的多元醇包括甘露醇、山梨醇、木糖醇、异麦芽酮糖醇、乳糖醇、麦芽糖醇、赤藓糖醇、氢化淀粉。
一项研究评估了山梨醇吸收不良与胃肠道症状之间的关系,该研究让7名健康参与者摄入不同剂量的山梨醇。在大多数受试者(7人中的4人)中,仅摄入5克山梨醇就与气体显著增加相关,而大多数受试者在摄入20克山梨醇后出现了严重症状(气体、腹胀、痉挛和腹泻)。
同样,在另一项包含10名健康志愿者的研究中,与摄入低剂量甘露醇相比,摄入含有高剂量甘露醇的水溶液导致的副作用发生率最高,包括肠胃气胀、腹泻和腹痛。
多元醇所带来的不适程度不仅与成分本身有关,也与摄入剂量密切相关。
蔬菜和水果相关的不适,本质上仍然是底物问题
从现有研究看,蔬菜和水果与肠道气体的关系,主要还是通过其中的果聚糖和多元醇来体现。
全谷物——果聚糖
全谷物常被视为健康食物,但并不意味着所有人都有同样的耐受性
小麦、玉米、大麦、黑麦、燕麦等谷物是世界大多数人口主要依赖的主食。与此同时,营养学和公共健康建议通常鼓励更多摄入全谷物而不是精制谷物。
《2020–2025美国膳食指南》建议每天至少摄入 3 盎司(约85克)全谷物,这主要基于全谷物与代谢健康相关的益处。
不过,这并不意味着全谷物在所有人群中都具有同样的胃肠耐受性,研究指出,全谷物虽然含有部分可发酵膳食纤维和抗性淀粉,但其中更值得关注的一个成分,是果聚糖。
全谷物中的果聚糖——与产气关系更密切的底物
谷物中的果聚糖与蔬菜水果中的果聚糖并不完全相同。前者主要属于左聚糖型,其结构特点是 β-呋喃果糖基单元通过 (2→6) 键连接到蔗糖分子上。这类果聚糖在谷物中的聚合度可达到约 90(说明它们属于结构相对复杂、可进入结肠发酵系统的一类底物)。
大量研究已将全谷物摄入与排气增加联系起来。
在一项非对照研究中,55%的IBS患者报告麸皮加重了其胃肠道症状,包括产气相关主诉。
关于麦麸的对照试验也报道,与安慰剂相比,参与者出现更多排气和腹部不适。
此外,Vuholm等考察了全麦和全黑麦对胃肠道症状的影响,发现摄入这些全谷物与健康志愿者排气增加显著相关。
部分人群需要关注FODMAPs
尽管小麦及其他谷物中的果聚糖等可发酵低聚糖、二糖、单糖、多元醇(FODMAPs)普遍被认为会在IBS患者中引起严重胃肠道症状,但也有研究指出,许多非乳糜泻性麸质敏感者实际上可能对小麦中的FODMAPs而非麸质敏感。
加工方式可能影响全谷物的产气潜力
已有研究开始评估不同工艺对谷物中果聚糖的影响。据推测可减少肠道气体及其他胃肠道症状。
一项研究评估了不同酸面团酵母菌株在96小时发酵过程中降解小麦粉中果聚糖的能力。发酵后,与传统面包酵母S. cerevisiae分离株相比,从澳大利亚酸面团中分离得到的Saccharomyces cerevisiae和Torulaspora delbrueckii能显著降低小麦粉中的果聚糖含量。
另一项研究还考察了,植物乳杆菌与酿酒酵母延长发酵时间在黑麦面团发酵过程中降解黑麦面包果聚糖的潜力。发酵3小时后,作者注意到,与仅用面包酵母发酵的面包相比,采用植物乳杆菌和酵母发酵的黑麦面包中果聚糖含量显著下降。
也就是说,原料本身之外,发酵工艺和加工方式同样会影响最终进入结肠的发酵底物负荷。
全谷物相关问题,更适合放在底物耐受性框架中理解
这里还可以区分两个层面来看:
前者有时可以结合菌群功能线索辅助理解,后者则更多与宿主本身的肠道动力、气体清除和感觉敏感性有关。
从干预角度看,全谷物相关不适更适合先放在果聚糖耐受的框架里理解,再进一步结合加工方式、摄入剂量和摄入频率做调整;如果同类底物反复诱发症状,后续也可以结合饮食记录、症状出现的时间窗,包括菌群线索,进一步判断问题更偏向发酵太强,还是本身更不耐受。
编辑
doi.org/10.1016/j.jff.2022.105367
乳制品——乳糖
乳制品相关不适,核心在于乳糖处理能力
牛奶和其他乳制品是加重胃肠道症状的食物之一,尤其是在全球相当一部分成年乳糖酶缺乏人群中。
乳糖是哺乳动物乳汁中特有的碳水化合物,人乳中含量约为7.2 g/100 ml,牛乳中约为4.7 g/100 ml。乳糖本身并不会直接引起气体问题,影响后续结局的是它能否在小肠被及时水解。
编辑
乳糖能否被消化,取决于乳糖酶活性是否足够
乳糖酶是负责水解乳制品中乳糖的酶。乳糖需要依赖乳糖酶水解为葡萄糖和半乳糖后,才能在小肠被吸收。
在大多数哺乳动物中,乳糖酶活性在儿童期较高,但会随年龄增长迅速下降。在人群中,仅约 30% 的人群在成年后仍保持乳糖酶持续表达,但这种乳糖酶持续性在不同人群中的分布差异很大。
这意味着,对相当一部分成年人来说,乳糖并不能在小肠被充分处理,而更容易进入结肠。
未被消化的乳糖会进入结肠并被菌群发酵
研究指出,当乳糖没有在小肠被充分水解为单糖时,它会进入大肠,成为菌群可利用的发酵底物。随后,肠道菌群会对其进行代谢,并产生相关气体。乳糖酶缺乏患者因结肠内乳糖发酵而出现排气增加。
乳糖进入结肠后,菌群组成会影响后续的代谢走向。某些菌群,尤其是双歧杆菌属和乳杆菌属,具有β-半乳糖苷酶活性,能够利用乳糖并完成进一步分解;同时,这两类菌更倾向于产生短链脂肪酸,而不像其他部分异型发酵菌那样更容易形成较高的氢气和甲烷输出。也就是说,乳糖进入结肠之后,会不会形成更明显的产气表型,和菌群如何处理这部分底物也有关系。
益生菌可能缓解乳糖不耐受症状的机制
编辑
doi: 10.1007/s10482-026-02278-x
部分人群对乳糖的耐受,可以随着菌群适应而变化
在乳糖不耐受人群中,长期、规律地接触乳糖后,肠道菌群可能发生适应性变化。
这种变化通常表现为具有β-半乳糖苷酶活性的乳糖发酵菌增加,例如双歧杆菌属和乳杆菌属丰度上升,同时结肠对乳糖的处理效率提高,呼气氢排出下降,症状减轻。
基于证据的、对乳糖不耐受有益的益生菌菌株
编辑
doi: 10.1007/s10482-026-02278-x
如果把肠道产气仅仅理解为吃了某类食物之后会不会胀,那么临床和健康管理层面的处理往往容易停留在经验性忌口、临时回避和泛化建议上。但从现有研究看,肠道产气所连接的并不只是食物和症状,还包括底物进入上消化道后的处理效率、结肠阶段的菌群代谢方式、不同耗氢通路的分流方向,宿主本身的动力和耐受状态等。这意味着,产气相关问题更适合被理解为一个可分层、可追踪、可干预的功能表型。
未来关于产气相关问题的管理,会包括对具体底物、具体通路和具体耐受阈值的识别。进一步判断:究竟是哪一类底物在反复诱发症状,进入结肠后被怎样的菌群结构处理,又是在什么剂量和什么摄入方式下开始越过个体的耐受边界。
肠道产气相关问题也越来越值得放到多维评估框架里看。饮食记录能帮助识别底物来源,症状时间窗能帮助判断反应时序,呼气试验能帮助捕捉功能性输出,而菌群相关信息则更适合帮助理解:个体的肠道,当前更偏向哪一种发酵和耗氢模式,是否已经出现了保护性代谢物不足、腐败代谢增强,或者硫代谢相关通路偏移。也就是说,菌群检测帮助我们把原本笼统的症状,推进到更具体的代谢理解和功能识别。
总的来说,肠道产气更像是肠道持续暴露自身代谢状态的一种外显方式。把这些信号读得更清楚,就更接近下一阶段更精细的营养干预和功能管理。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Hao Y, Du X, Cai C, Zhao Y, Ren Y. Ammonia and hydrogen sulfide – new insights into gut microbiota and male infertility through meta-analysis. Front Cell Infect Microbiol. 2025 Jan 6;14:1449453.
Dirks B, Davis TL, Carnero EA, Corbin KD, Smith SR, Rittmann BE, Krajmalnik-Brown R. Methanogenesis associated with altered microbial production of short-chain fatty acids and human-host metabolizable energy. ISME J. 2025 Jan 2;19(1):wraf103.
Birg A, Lin HC. The Role of Bacteria-Derived Hydrogen Sulfide in Multiple Axes of Disease. Int J Mol Sci. 2025 Apr 3;26(7):3340.
Chen B, Zhang Y, Du L, Jin J, Dai N. Advances in the mechanism of low FODMAP diet in the treatment of irritable bowel syndrome: a review. Front Nutr. 2026 Mar 12;13:1719048.
Allegretti JR, Kassam Z, Kelly CR, Grinspan A, El-Nachef N, Van Den Elzen C, Jäger R, Feuerstadt P. A Randomized, Placebo-Controlled Trial Evaluating Multi-Species Synbiotic Supplementation for Bloating, Gas, and Abdominal Discomfort. Nutrients. 2026 Jan 14;18(2):255.
Perets TT, Gingold-Belfer R, Dickman R. Lactose intolerance and probiotics: from pathophysiological mechanisms to clinical applications. Antonie Van Leeuwenhoek. 2026 Mar 17;119(4):67.
Bin Waqar SH, Rehan A. Methane and Constipation-predominant Irritable Bowel Syndrome: Entwining Pillars of Emerging Neurogastroenterology. Cureus. 2019 May 28;11(5):e4764.
Erasme Mutuyemungu, Mukti Singh, Sean Liu, Devin J. Rose, Intestinal gas production by the gut microbiota: A review, Journal of Functional Foods,Volume 100, 2023