-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
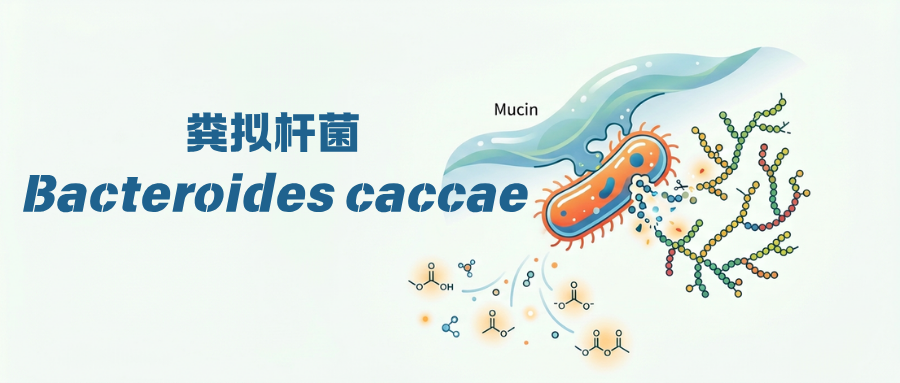
粪拟杆菌(Bacteroides caccae)是一种革兰氏阴性、厌氧细菌,是人类肠道微生物群中不可或缺的成员,在多糖和寡糖代谢方面发挥着重要作用。
需要注意的是,粪拟杆菌有时会与粪便拟杆菌(Bacteroides stercoris)混淆。根据谷禾数据库的人群检出率数据,Bacteroides stercoris 的检出率通常较高,可达 97.12%;相比之下,Bacteroides caccae 的检出率相对较低些,为 85.58%。
Bacteroides caccae还是最早定植在婴儿肠道中的微生物之一,这一点尤为重要,尤其是在婴儿时期。这一时期会影响到结肠的环境,并可能对日后健康与发育产生影响。
B. caccae能够利用多种碳源,包括黏蛋白和复杂糖类,这为它自身以及其他有益的肠道细菌创造了生存空间。它还能产生抗炎分子,有助于减轻炎症、促进黏膜免疫系统的正常运作,并维护肠道健康。
然而,B. caccae在身体虚弱或免疫力下降的情况下也可能成为机会性病原体,能够侵入血液系统并引发严重的感染。
形态学特征
•革兰氏阴性
•专性厌氧
•无芽孢
•形态:典型为小杆菌/短杆菌,不具运动性
•类型菌株:ATCC 43185
血液中的Bacteroides caccae
编辑
doi: 10.1177/03000605211047277.
生长环境与生态位
↘ 生长条件
•温度:适宜于37°C
•氧条件:需要厌氧环境
•营养类型:对肠道里可利用的多糖(如阿拉伯糖半乳聚糖 AG、阿拉伯半乳聚糖相关底物)、宿主糖胺聚糖(GAG,如软骨素硫酸盐)、黏蛋白相关糖蛋白/糖肽以及蛋白质(如乳清蛋白)都有代谢能力。
↘ 生态位与“营养稀缺策略”
拟杆菌属的重要生物学逻辑是:当单糖/寡糖等可利用底物不足时,会通过大规模酶体系(外膜摄取受体、胞外/周质水解、胞内转运与代谢)将复杂底物拆解后再进行利用。
蛋白水解的代谢研究表明,补充乳清蛋白后,B.caccae的生长速率、最终生物量和 SCFAs(短链脂肪酸)生成显著提高。
GAG(软骨素)降解相关基因机制研究证明其具备对糖胺聚糖结构进行分段降解的酶协同能力。
黏蛋白降解的 O-糖肽酶机制研究指出:B. caccae 通过多样化的 M60 家族 O-糖肽酶识别并切割黏蛋白中的 O-糖链,从而打开宿主黏液的营养来源。
人群中的分布
↘ 健康人群中较常见
B. caccae在健康成人肠道菌群中并非罕见成员,且丰度会受到出生方式、喂养方式、饮食结构等影响。
↘ 可以由母亲传给婴儿
编辑
影响因子:4.016
一项大型斯堪的纳维亚队列研究表明:拟杆菌属菌株在阴道分娩婴儿中更常检出,其中B. caccae与 Phocaeicola vulgatus的检出率更高;同时,B.caccae被界定为首次明确证实的母婴共享拟杆菌菌株之一。
这提示:分娩方式会影响婴儿早期的定植生态,而拟杆菌属(包括 B. caccae)具备母体传播并在婴儿早期肠道建立的潜力。
代谢能力
B. caccae的代谢能力可概括为三条主线:
(A)复杂膳食多糖/寡糖
(B)宿主黏液/糖胺聚糖
(C)蛋白 → 发酵终产物(含 SCFAs)
↘ 黏蛋白降解:O-糖肽酶的底物识别与切割
编辑
影响因子:4.238
“黏蛋白降解 O-糖肽酶”研究指出:
该菌有16个peptidase_M60 家族 O-糖肽酶基因;
至少13个能产生活性黏蛋白降解酶;
通过高通量 FRET 筛选 + 动力学分析,鉴定到5种关键的 O-糖肽酶;
虽然这些酶亲缘关系接近,但表现出显著不同的底物选择性。
这解释了为什么 B. caccae 能高效“拆解多样化黏蛋白糖肽底物”:它不是单一酶负责全部,而是同家族多酶并行,通过底物谱差异提高覆盖面。
↘ 糖胺聚糖/软骨素硫酸盐降解
编辑
影响因子:4.238
对软骨素(chondroitin)/糖胺聚糖降解的研究展示了典型 Bacteroides 风格的“基因座模块化”:
多糖利用位点(PUL)的一部分成分可触发对软骨素硫酸盐的降解,过程涉及去磺化,可把含硫的结构转化为无磺化软骨素。
文献还给出了关键酶的协同关系,例如:
•BcPL35(多糖裂解酶)作为启动/关键切割环节;
•BcGH88(外切β-尿核苷水解酶)与其协同;
•BcGH109(α/β-N-乙酰半乳糖基苷酶)参与特定糖基片段的处理;
•BcGDH(作为新的糖脱水酶)在代谢结构分解理解中很重要。
这个证据支持:B. caccae能把宿主/来源于组织或动物制品的糖胺聚糖作为“可优先营养”。
↘ 膳食多糖利用:发酵与拟杆菌互作
AG(阿拉伯糖半乳聚糖)发酵中拟杆菌种类之间相互作用”的研究显示:
编辑
影响因子:6.306
在对来自枸杞的 LBP-3(AG相关底物)进行发酵时,P. vulgatus 与 B. caccae对底物的偏好不同:
P. vulgatus更偏好阿拉伯糖(Ara)富集链段;
B. caccae更偏好半乳糖(Gal)富集链段。
两者在发酵过程中释放的寡糖种类数不同(例如 P.vulgatus鉴定出更多种寡糖片段),体现“功能互补”,这些发酵上清/产物还能促进其他 Bacteroidetes的生长,尤其促进P. distasonis、B. uniformis等(交叉喂养的生态证据)。
此外,单培养中,B. longum和B. caccae对 AG 的降解都不算高(48h分别约25%与39%)。
但共培养后发生生态位重排:B. longum的生长增强、AG降解可提高到约48%。同时观察到pH下降,并对B. caccae的生长/代谢产生抑制,提示可能存在“代谢互作 + 环境约束(酸化)”的双重作用。
↘ 蛋白利用:乳清蛋白补充增强生长与SCFAs
编辑
影响因子:6.633
为B. caccae 设计蛋白水解模块的代谢建模”提供了更偏代谢工程/系统生物学的证据:
补充乳清蛋白后,B. caccae生长速率、最终生物量、SCFAs产生显著增加;
基因组分析识别出大量候选蛋白酶及氨基酸转运相关系统
这支持了:B. caccae 不只是多糖/黏液使用者,也能在高蛋白饮食或蛋白可用性升高情境中发挥显著代谢贡献。
与人体及其他菌群的互作
① 互作1:交叉喂养
AG(阿拉伯糖半乳聚糖)发酵时,不同拟杆菌对链段偏好不同 → 释放不同寡糖谱;这些寡糖/上清可以促进其他拟杆菌门甚至副拟杆菌属的生长。
这是一种“生态网络层面的互补利用”。
② 互作2:环境约束(酸化/代谢产物)
B. longum 与B. caccae共培养研究显示:
双歧杆菌可能通过发酵产物导致pH下降,从而对 B. caccae 生长/代谢形成抑制。
这说明互作不是“总是协同”,而是会受到代谢产物和局部生态位条件共同调制。
③ 互作3:与免疫相关外膜蛋白
用与炎症性肠病(IBD)相关的 pANCA 单克隆抗体从 B. caccae 鉴定到一个约 100 kDa 的 TonB 连接型外膜蛋白,命名为 OmpW。OmpW 仅在B.caccae 中存在(至少在他们检测的范围内是拟杆菌特异)。
序列/结构域分析表明其为 TonB 连接受体家族成员
部分克罗恩病(CD)患者体内针对 OmpW 的IgA升高,提示其可能成为 CD 相关免疫应答靶标。
但研究人员也强调:抗 OmpW IgA 与 pANCA 活性并非完全一致(提示免疫谱复杂,不同患者/不同抗原的主导性不同)。
Bacteroides caccae 的健康益处
B. caccae在人体健康状态下可能具有以下作用:
1. 影响婴幼儿早期肠道微生态
Bacteroides caccae在婴儿肠道的早期定植过程中起着重要作用。这种细菌是首先定植在婴儿肠道中的微生物之一,尤其是在通过阴道分娩的婴儿身上。
B. caccae的早期定植可能会改变肠道微环境,进而可能影响幼儿的身体健康和后期发育。
2. 影响婴儿的免疫分化、避免过敏
B. caccae,能够降解多种糖苷物质。通过分泌脂多糖(LPS),并刺激T细胞的产生和分化,有助于帮助婴儿避免患上过敏性疾病。
B. caccae相对丰度较低与婴儿食物过敏及特应性皮炎发生相关,提示早期细菌定植具有重要意义。
3. 把黏蛋白作为可利用的营养
B. caccae能够利用多种碳源,包括黏蛋白以及简单和复杂的糖类。B. caccae是黏蛋白降解能力很强的拟杆菌,其基因组中含有16个 peptidase_M60 家族的 O-糖肽酶(O-glycopeptidases)候选基因,并且对底物识别/切割具有多样的底物选择性。
在正常菌群结构下,这类酶系统可能帮助细菌更有效地利用黏液表层的糖蛋白片段;
在与其他菌的交叉喂养网络耦合时,可能促进群落代谢稳定(例如把大分子糖蛋白逐级降解为更小的寡糖/氨基酸或发酵底物)。
•关键点:这类“黏蛋白降解”在健康里不必然是坏事——它取决于菌群平衡、黏膜屏障状态与底物供给是否匹配。
•与AKK菌是否相似?
从代谢角度看,B.caccae与Akkermansia muciniphila的相似性在于二者均能利用黏液相关糖结构作为营养来源。
但“黏液利用”在健康中的意义并非由降解能力单独决定,而更可能取决于:黏膜屏障的稳态水平、菌群间交叉喂养网络能否将降解产物进一步转化为有利代谢物,以及底物供给与降解位点是否匹配。因此,黏液相关降解在正常生态中可能通过逐级分解与底物再分配促进代谢稳态;而在屏障受损或底物结构失衡时,降解过程可能改变黏膜微环境并影响炎症走向。
4. 拓展营养底物谱,参与群落“功能分工”
•降解代谢糖胺聚糖(GAG,如软骨素硫酸盐)
B. caccae的多糖利用位点(PUL)相关元件参与软骨素/糖胺聚糖结构的降解,并且过程涉及脱磺化把含硫结构转成无磺化软骨素等形式。
PUL中关键酶存在协同关系(例如由多糖裂解酶 BcPL35 启动,并与其他外切/特定糖苷酶共同作用)。
注:某种新的糖脱水酶(BcGDH)对结构分解很关键。
健康意义:在饮食结构多变(纤维、动物源成分差异)或宿主组织糖胺聚糖可用性变化时,B. caccae 可能帮助肠道保持对复杂糖底物的处理能力,从而维持代谢输出的“可持续性”。
•对复杂多糖/寡糖的利用与互作
在单培养中,B. caccae对 AG 的利用效率有限,且与部分共培养伙伴(如双歧杆菌)之间未表现出强协同;但在共培养后,生态互作效应明显出现:例如可通过改变 pH 与发酵产物谱,进而重塑底物降解程度。pH 下降并抑制某一菌生长,正是典型的“代谢互作”表现。
健康意义:
B. caccae很可能是拟杆菌网络中能在特定底物类型下承担“分解/发酵”环节的一员;
其代谢产物、酸化效应、对寡糖谱的贡献,会影响群落成员的生长与竞争/互利平衡。
此外,B. caccae 还能产生抗炎分子,有助于减轻炎症,从而在构建黏膜免疫系统和维持肠道健康方面发挥重要作用。
总结来说,Bacteroides caccae是一种在人体肠道中至关重要的细菌,它对肠道早期定植和免疫系统的发育起着重要作用。此外,这种细菌还具备多种健康益处,例如抗炎作用以及能够利用多种碳源的能力。
Bacteroides caccae 的致病性影响
虽然B. caccae 在肠道中具有一定的益处,但在健康状况不佳的人群中,它可能会成为一种机会性病原体。
1. B. caccae 可能导致感染
编辑
虽然较为罕见,但这种情况仍有可能发生。在一项报道中,有一名 42 岁的男性患者,患有肾性高血压和胃肠道出血,他出现了由 B. caccae 引起的菌血症现象。
• B. caccae 过多时分解黏蛋白的能力会破坏肠道屏障
B. caccae与 Bacteroides thetaiotaomicron 可共同降解覆盖在上皮细胞上的保护性黏液层中的糖胺物质。由于它们将这些多糖作为能量来源,因而被称为“多糖通用者”,能灵活利用多种多糖,包括膳食纤维以及宿主黏液糖蛋白中的糖链。
因此,B. caccae 可通过自身对黏液糖蛋白的代谢潜力来影响黏液屏障:黏液层究竟更可能被维持还是被破坏,很大程度取决于结肠内是否存在膳食纤维。膳食纤维还能为细菌提供替代能量来源;当其不足时,黏液层可能变稀,从而增加肠道感染与炎症风险。
2. 炎症性肠病:从免疫靶点到黏膜界面
研究者用与 IBD 相关的抗体(pANCA 单抗)从 B.caccae 鉴定出一个约 100 kDa 的TonB-连接型外膜蛋白;在部分 IBD(尤其与 CD 相关)的免疫谱中,该蛋白伴随 IgA 反应增强现象。
• B.caccae 的特定分子可能更易被免疫系统识别
这类结果通常提示:B. caccae 的特定分子产物在疾病状态下更容易被免疫系统“看到”(暴露增加/屏障改变/菌体增多或活化等),因此可作为候选免疫标志物或机制靶点。
3. 其他炎症/代谢相关疾病
对于非 IBD 疾病(如代谢性疾病、肥胖/胰岛素抵抗等),B. caccae更像是“可连到特定代谢通路的候选菌”,其潜在作用可主要通过其代谢能力解释(多糖/GAG/黏蛋白降解、产酸、SCFA 谱变化及群落互作);但要认定其是否为真正的原因菌,仍需更强的证据支持。
与 B.caccae 相关的潜在治疗方法有哪些?
Bacteroides caccae的治疗通常侧重于恢复和维持健康的肠道微生物群。可能的治疗方法包括:
益生菌和益生元:有助于促进有益细菌的生长。
饮食上的改变:多吃富含纤维的食物,以帮助维持平衡的微生物群。
抗生素:在怀疑存在菌群过度生长或感染的情况下可以使用抗生素。不过,如果使用过量,抗生素也会破坏微生物群的正常平衡。
粪便微生物群移植术:在肠道菌群失调的严重情况下,可以考虑采用这种疗法来恢复肠道细菌的平衡状态。
如何支持有益细菌的生长呢?
促进如 Bacteroides caccae 这类有益细菌的生长需要:
保持均衡的饮食,摄入富含膳食纤维的食物,尤其是来自水果、蔬菜和全谷物的食物。
食用发酵食品,如酸奶、酸乳酪和泡菜
应避免过度使用抗生素,因为抗生素会破坏肠道微生物群落的平衡。
保持健康的生活方式,通过定期锻炼和管理压力来保持健康。
粪拟杆菌(Bacteroides caccae)作为拟杆菌属重要的物种,也是人类肠道常见的共生菌。喜欢在没有氧气的环境中生长,能够分解吃进去的复杂膳食纤维,也能利用肠道黏液中的一些糖类物质作为营养。它值得一提的特殊之处是拥有一套比较完整的“分解工具”,可以识别并拆解黏液中的特殊糖链。
从基因和功能来看,粪拟杆菌像是把不同的“分解模块”组合在一起,因此能够适应肠道里多种不同的营养来源。在母亲和婴儿之间也可能共享这种细菌。这些特点说明,它通常是肠道微生物群中比较稳定、具有一定功能的成员。
在肠道健康、菌群平衡时,Bacteroides caccae可以帮助回收和利用食物残渣及肠道黏液中的物质,参与维持肠道的营养和代谢平衡。
在菌群失衡、肠道屏障受损或发生炎症时,Bacteroides caccae的一些细胞表面成分可能刺激免疫系统;同时,它对肠道黏液的分解活动也可能影响黏膜屏障,从而与某些疾病的发生或加重有关。
主要参考文献
Nilsen M, Rehbinder EM, Lødrup Carlsen KC, Haugen G, Hedlin G, Jonassen CM, Killingstad ME, Nordlund B, Ormaasen I, Skjerven HO, Snipen L, Staff AC, Söderhäll C, Sørensen R, Vettukattil R, Wilborn LM, Rudi K. A Globally Distributed Bacteroides caccae Strain Is the Most Prevalent Mother-Child Shared Bacteroidaceae Strain in a Large Scandinavian Cohort. Appl Environ Microbiol. 2023 Jul 26;89(7):e0078923.
Pluvinage B, Bourdon K, Canil O, Deventer A, Alvarez B, Mihalynuk L, Thompson N, Wakarchuk W, Boraston AB. Substrate recognition and cleavage by mucin degrading O-glycopeptidases from the gut microbe Bacteroides caccae. J Biol Chem. 2026 Aug;302(8):113222.
Alvarez B, Canil OF, Low KE, Hettle AG, Abbott DW, Boraston AB. Analysis of chondroitin degradation by components of a Bacteroides caccae polysaccharide utilization locus. J Biol Chem. 2025 Jul;301(7):110354.
Paulay A, Grimaud GM, Caballero R, Laroche B, Leclerc M, Labarthe S, Maguin E. Design of a proteolytic module for improved metabolic modeling of Bacteroides caccae. mSystems. 2024 Apr 16;9(4):e0015324.
Yang Y, Zhang Q, Hu H, Zhang W, Lu T. Bloodstream infection caused by Bacteroides caccae in a patient with renal hypertension: a case report. J Int Med Res. 2021 Oct;49(10):3000605211047277.
Wang Y, LaPointe G. Arabinogalactan Utilization by Bifidobacterium longum subsp. longum NCC 2705 and Bacteroides caccae ATCC 43185 in Monoculture and Coculture. Microorganisms. 2020 Oct 31;8(11):1703.
Wei B, Dalwadi H, Gordon LK, Landers C, Bruckner D, Targan SR, Braun J. Molecular cloning of a Bacteroides caccae TonB-linked outer membrane protein identified by an inflammatory bowel disease marker antibody. Infect Immun. 2001 Oct;69(10):6044-54.
Cao C, Wang L, Zhang X, Ai C, Wang Z, Huang L, Song S, Zhu B. Interaction between Bacteroidetes species in the fermentation of Lycium barbarum arabinogalactan. Food Chem. 2023 May 30;409:135288.
谷禾健康
蚊子可能不只是在“闻”你的汗。
它甚至可能在“闻”你的营养状态。
为什么有些人走到哪里都被蚊子追着咬,有些人却像隐身一样?一到夏天,“为什么蚊子偏偏咬我”就成了经久不衰的话题。
编辑
我们平时说招蚊子,很容易想到血型、体温、出汗,或者笼统地归结为玄乎的“体质”。但从蚊子的角度看,它其实是利用二氧化碳、热量和人体气味来精准锁定宿主的。而“人体气味”绝不是一个简单的变量——它是宿主自身代谢、皮脂、汗液以及皮肤微生物共同发酵出的一套复杂的“生化信号”。
一个有趣的猜想是,我们身体营养状态的变化,会不会通过皮肤菌群和挥发性代谢物,进一步影响蚊子的选择?
近日,来自清华大学、复旦大学等机构的研究团队在《Cell Research》(IF=31.1)发表研究发现,营养不足会让你对蚊子产生致命的吸引力。
研究表明,营养不良会导致宿主的皮脂腺功能减退,使皮肤表面的“天然抗菌防线”(游离脂肪酸)大幅减少。失去压制后,特定皮肤共生菌野蛮生长,挥发出大量的庚醛、辛醛和壬醛。正是这些散发着特殊气味的挥发物,精准锁定了蚊子的嗅觉雷达。
编辑
本文我们来深入了解这项研究,它不仅破解了“招蚊体质”,更为我们理解虫媒传染病提供新的视角——疾病传播不只取决于病原体和媒介,宿主自身的生理状态及其塑造的微生态,也可能成为影响传播效率的重要变量。
四种疾病媒介蚊虫,都表现出了相似偏好
研究者首先构建了营养不足小鼠模型,并使用三笼式嗅觉仪和双通道嗅觉仪,让蚊虫在营养正常和营养不足的小鼠之间进行选择。
实验测试了四种常见疾病媒介蚊虫:
埃及伊蚊(Aedes aegypti)
白纹伊蚊(Aedes albopictus)
致倦库蚊(Culex quinquefasciatus)
斯氏按蚊(Anopheles stephensi)
编辑
结果非常一致:四种蚊子都更倾向于营养不足的小鼠。
这意味着,这种现象可能并不局限于某一种蚊虫。
关键在气味
蚊子寻找宿主时,会综合使用体温、二氧化碳和挥发性气味等线索。
研究者因此继续比较两组小鼠。结果发现,营养不足小鼠与正常小鼠之间,体温和二氧化碳排放没有明显差异。
但当研究人员在嗅觉实验装置中加入除味装置,将宿主释放的挥发性物质从气流中去除之后,蚊子对营养不足小鼠的偏好消失了。
这说明,导致蚊子“区别对待”的核心因素,很可能是宿主气味发生了变化。
于是,问题进一步变成:营养不足的小鼠,到底多了什么气味?
从93种挥发性化合物中,锁定三种醛
研究者利用综合二维气相色谱—飞行时间质谱(GC×GC-TOFMS),分析营养正常和营养不足小鼠释放的挥发性有机物(volatile organic compounds,VOCs)。
一共检测到 93 种化合物。
进一步筛选后,研究人员利用触角电位技术(electroantennography,EAG),直接检测蚊虫触角对这些化合物的反应。最终,有三种挥发性醛类脱颖而出:
庚醛(heptanal)
辛醛(octanal)
壬醛(nonanal)
这三种物质均能在埃及伊蚊、白纹伊蚊、致倦库蚊和斯氏按蚊中引起明显的触角电生理反应,而且呈现一定的剂量依赖关系。
营养不足小鼠释放的三种醛明显增多
接下来,研究者使用固相微萃取—气相色谱质谱(SPME-GC/MS)对三种醛进行绝对定量。结果显示,营养不足小鼠释放的庚醛、辛醛和壬醛,约为正常小鼠的2-4倍。
编辑
当研究人员按照营养不足小鼠的浓度比例,人工配置这三种醛,再涂到已经去除皮肤菌群的小鼠身上时,蚊子同样表现出了更明显的趋向。
也就是说,这三种挥发性物质并不只是“伴随变化”,它们本身就能够驱动蚊虫行为。
动物实验之后,研究团队进一步招募了营养不足者和健康对照。
营养不足者的皮肤气味更吸引蚊子
研究中的营养不足者具有长期营养不足史,成年人BMI低于18 kg/m²,同时蛋白质摄入水平较低。最终有 24 名营养不足者和24 名健康对照参与蚊虫趋向实验,并按照性别、年龄和地区进行匹配。
为了判断蚊子究竟是不是被“气味本身”吸引,研究人员先让参与者在前臂佩戴尼龙套24小时,收集皮肤释放的挥发性物质。随后,将这些带有不同人体气味的尼龙套置于37 ℃加热装置上,让气味重新释放,再送入嗅觉仪供蚊子选择。
结果显示:即使没有真人参与,来自营养不足者的气味样本,对蚊子的吸引力明显高于健康人群。
为进一步验证,研究人员又将营养不足者和健康对照的气味样本分别置于同一名健康志愿者的两侧前臂,使两边的人体背景尽量一致,再利用双通道嗅觉仪让蚊子进行选择。结果依然相同:携带营养不足者气味的一侧更受蚊子偏爱。
人体中,同样是庚醛、辛醛和壬醛升高
研究者随后从24对受试者中随机选择12对进行挥发性代谢物分析。结果显示,营养不足者释放的庚醛、辛醛和壬醛均明显增多,其释放量大约达到健康人群的3-5倍。
注:有意思的是,庚醛、辛醛和壬醛并不是营养不足者特有的异常代谢物,它们本来就是人体皮肤挥发组的一部分。真正发生变化的,更可能是释放量和不同VOCs之间的比例。这也意味着,蚊子识别的可能是一套具有特定浓度和比例的气味组合。
研究者按照健康组和营养不足组实际检测到的比例分别配置三种醛,并涂在同一个人的两侧前臂上进行比较。结果再次显示,模拟“营养不足气味”的一侧吸引了更多蚊子。
至此,小鼠和人体实验得到了一致结果:
营养不足会改变皮肤挥发性气味谱,其中庚醛、辛醛和壬醛是重要的蚊虫吸引信号。
编辑
但这里还有一个更关键的问题。这些挥发性醛,到底是谁产生的?
而当研究人员去除皮肤菌群之后,发现营养不足小鼠和正常小鼠之间原本明显的蚊虫吸引差异消失了;与此同时,庚醛、辛醛和壬醛的释放也几乎被消除。
这说明,皮肤微生物是这些蚊虫吸引性醛类的重要来源。
葡萄球菌和链球菌增加
进一步检测皮肤微生物后,研究者发现,营养不足小鼠皮肤上可培养细菌数量超过正常组的10倍。
16S rDNA测序则发现,其中葡萄球菌属(Staphylococcus)和链球菌属(Streptococcus)明显增加。
研究人员从小鼠皮肤中分离出多种葡萄球菌,包括:
Staphylococcus sciuri
Staphylococcus xylosus
Staphylococcus pseudoxylosus
体外培养发现,这些细菌都能够产生庚醛、辛醛和壬醛。
注:从化学结构上看,这三种物质都属于直链脂肪醛,与皮肤表面的脂质代谢关系密切。皮脂中含有大量甘油三酯、脂肪酸和蜡酯,而葡萄球菌等皮肤微生物本身具有脂酶等脂质代谢能力,可以水解、利用和改造宿主提供的脂质底物。近年来的研究也越来越倾向于把皮肤看成一个“脂质驱动的微生态系统”:宿主提供脂质,微生物再对这些脂质进行二次加工,从而产生新的代谢产物。
营养不足后,到底是“产醛菌”变多了,还是同样的细菌在不同皮脂底物环境下改变了代谢通量,抑或两者同时发生?本研究已经证明相关菌株能够产醛,但具体是哪类脂质底物、哪些微生物酶以及哪条代谢路径贡献最大,还有待进一步解析。
当研究者再把这些细菌涂到小鼠皮肤上时,小鼠对多种蚊子的吸引力随之增强。
人体结果也非常相似
营养不足者皮肤上的可培养细菌同样显著增加,葡萄球菌属和链球菌属丰度升高。
研究者分离出的Staphylococcus epidermidis、Staphylococcus hominis、Staphylococcus warneri、Staphylococcus capitis、Streptococcus salivarius等,在模拟人体汗液和皮脂环境中,也都能够产生上述挥发性醛类。
编辑
那么问题来了,为什么营养不足会让皮肤菌群大量增长?
营养不足损伤了皮脂腺功能
研究者对小鼠皮肤进行了转录组、组织学和脂质分析。
结果发现,营养不足小鼠的皮肤层明显变薄,皮脂腺形态和发育出现异常,皮脂腺面积减小,皮脂含量也显著下降。
这一步很重要。因为皮脂并不只是我们日常理解中的“油”。皮脂中包含多种具有抗菌活性的游离脂肪酸,是维持皮肤微生态稳态的重要组成部分。
多种具有抗菌作用的游离脂肪酸减少
研究人员进一步进行LC-MS/MS检测发现,营养不足小鼠皮肤表面的多种游离脂肪酸下降,包括肉豆蔻油酸(myristoleic acid)、顺式-10-十五碳烯酸(cis-10-pentadecenoic acid)、丁酸、丙酸等。
体外抑菌实验显示,其中部分脂肪酸能够明显抑制此前筛出的葡萄球菌。
在人群样本中也观察到类似现象:营养不足者皮肤表面多种游离脂肪酸含量降低。
正常情况下,皮脂腺分泌的脂质和游离脂肪酸,会对皮肤微生物形成持续的选择压力。
当营养不足导致皮脂腺功能下降、抗菌脂肪酸减少后,这层“生态约束”被削弱,一部分细菌便获得了更多增殖空间。
于是:
皮脂腺功能下降 → 抗菌脂肪酸减少 → 葡萄球菌等扩增 → 挥发性醛增加。
研究者还进一步通过干预验证了这条链路:给营养不足小鼠补充相应脂肪酸后,皮肤细菌数量和三种挥发性醛均下降,对蚊虫的吸引力也随之降低。
营养不足还会提高登革病毒感染和传播效率
如果营养不足只是让人更“招蚊子”,这件事本身就已经够烦了。被叮之后的红肿、瘙痒,常常让人忍不住反复抓挠;尤其到了蚊虫活跃的季节,几只蚊子就足以让人坐立不安,甚至影响休息。
但研究者进一步发现,它还可能同时影响病毒传播的另一端。
在登革病毒2型(DENV2)感染实验中,营养不足小鼠感染后体内病毒载量更高。
与此同时,蚊子在营养不足小鼠身上的吸血率更高;这些蚊子吸血以后,体内DENV2的病毒载量和感染率也更高。
“蚊子-宿主-蚊子”传播循环被进一步放大
研究人员随后设计了一个更接近群体传播的实验。
编辑
他们分别建立营养不足小鼠占比为0%、10%和60%的三个群体,再让携带DENV2的埃及伊蚊进入其中。
结果显示,在营养不足个体占比达到60%的群体中,小鼠病毒载量更高;随后前来吸血的未感染蚊虫,其吸血率和DENV2感染率也更高。
编辑
蚊子挑人,挑的不只是“体味”,还有营养状态在皮肤菌群上留下的痕迹。这项研究揭示了,营养不足削弱皮肤的脂质防线,改变皮肤微生态,进而改变气味,让宿主更容易成为蚊子的目标。
看似是蚊子的偏爱,背后却是营养、皮肤屏障与微生物共同作用的结果。 营养不良带来的风险,可能不只在于削弱身体抵御感染的能力,也包括更容易成为蚊虫叮咬的目标。
小编点评
我们常说“弱肉强食”,而在微观层面,大自然的设计更为冷酷,疾病往往会寻找最脆弱的缺口进行精准打击。
这不仅是一项关于蚊子口味的趣味发现,更是对现代公共卫生防御体系的启示。未来值得期待的是防控思路的拓展:除了阻断蚊虫叮咬,能否通过改善营养、维护皮肤微生态,减少宿主易受叮咬的条件?
过去,医学与公共卫生多将视角局限于宿主免疫与病原体本身;而未来,精准的菌群检测与微生态代谢物图谱,将成为撬动疾病预防与健康评估的底层杠杆。
当我们能通过便携、高精度的微生态检测,在分子与菌群丰度层面提前捕捉微生态失调与代谢异常的微弱信号,传统的“被动驱蚊、发病后治疗”模式将重构。
菌群检测也不局限于肠道,皮肤、呼吸道等更细分的微生态测序与代谢物分析,将为精准评估个体的营养储备、免疫机能乃至环境适应力,提供数据支撑。
不仅是公共卫生,这套认知同样能切实赋能大众的个护与美业。当我们量化皮肤表面的微生态与代谢状态时,针对性的微生态护肤、精准营养干预将变得有据可依。
主要参考文献
Wang M, Song X, Zhu Y, Niu J, Wang G, Wang Y, Xiao H, Lei D, Wu T, Liu L, Wang P, Wang J, Cheng G. Undernutrition enhances host attractiveness to mosquitoes and transmission of mosquito-borne diseases. Cell Res. 2026 Sep 16.
谷禾健康
结直肠癌(CRC)与肠道菌群之间的关系已有较充分的研究证据,但不同地区、不同人群以及不同研究设计所获得的具体菌群特征往往存在差异。相同细菌在不同队列中,也可能呈现出不同程度的疾病相关性。因此,单纯依赖某一个菌种的出现或丰度变化,往往难以形成稳定、可重复、具有广泛适用性的疾病标志物。
这也意味着,菌群检测真正需要解决的,并不是简单判断“某一种菌增加了还是减少了”,而是要从高度个体化、易受地域、饮食、生活方式及短期生理状态影响的菌群数据中,识别出跨人群、可重复、具有生物学解释力的稳定信号。换言之,疾病相关菌群更可能表现为一种由多个菌种、功能基因、代谢通路及菌群互作共同构成的整体状态。
近日,一篇发表于《Gut Microbes》的研究提出了另一种解释:结直肠癌相关菌群可能并不是由一组固定的菌群物种定义的,而是由不同细菌共同形成某种趋同的功能状态。也就是说,虽然不同患者体内的具体菌种可能并不完全相同,但它们可能通过不同的菌种组合,共同实现相似的营养获取、环境适应、微生物竞争以及与宿主相互作用的功能。
这一发现与谷禾健康构建菌群检测分析模型的基础逻辑高度契合。谷禾并不将检测结果简单建立在单一菌种或单一丰度指标之上,而是依托海量肠道菌群数据,重建和训练菌群基础大模型,在菌种组成的基础上进一步识别菌群功能、代谢通路及其相互作用关系,并通过功能和健康轴提取与疾病状态相关的综合特征。这样,模型关注的就不再是某一个菌种在某一次采样中的短期波动,而是菌群整体是否形成了与特定疾病或健康状态相对应的功能模式。
该研究利用泛基因组和共关联基因簇(CAGs)框架,分析 13 种细菌、3711 个 CAG,并在来自日本、美国和欧洲的三个 CRC 宏基因组队列中评估其关联。结果显示,CRC 与健康相关的菌群特征并不能简单归结为某一类固定物种:谱系内较稳定的“专职型”特征与跨谱系分布的“兼职型”特征可以同时存在,而不同物种之间还出现了功能趋同与组合关联。
编辑
这说明,疾病相关信号可能同时存在于多个层次:既包括菌种和菌株层面的变化,也包括基因簇、功能模块、代谢通路以及不同菌群成员之间的协同或拮抗关系。对于实际检测而言,从单一指标转向多维特征整合,能够减少对某一个菌种、某一个基因或某一次丰度变化的依赖,从而更接近复杂疾病真实的微生态基础。
谷禾健康模型正是基于这一思路,将海量样本中的物种组成、菌群丰度、功能基因、代谢能力、菌群互作及宿主相关健康特征进行系统整合,并通过模型训练识别不同疾病状态下反复出现的功能组合和代谢网络。由于疾病相关的生态改变可能由不同菌种通过趋同功能共同实现,因此,即使个体之间的具体菌群成员存在差异,模型仍有机会通过更高层级的功能信号识别其共同的疾病相关状态。这也是谷禾健康菌群检测模型能够兼顾准确性、稳定性与生物学解释力的重要基础。
物种组成和丰度是理解肠道菌群的重要基础,也是目前微生物组研究中最常用的信息维度之一。但对于结直肠癌(CRC) 这类复杂疾病,仅依赖单一物种的升高或降低,往往还不足以解释菌群与疾病之间复杂的生物学关系。
这篇研究进一步把分析尺度延伸到了泛基因组和功能基因层面。原因在于,同一物种内部不同菌株的基因组成并不完全一致,而系统发育距离较远的细菌,也可能因为趋同进化、基因获得与丢失,甚至水平基因转移,携带相似功能的基因。
对实际菌群检测而言,研究尺度越细并不意味着单一指标就越有解释力。复杂疾病往往涉及多种微生物、功能和生态关系,因此,如何基于足够大的参考数据库,从多个菌群特征中识别稳定的疾病相关模式,可能比单独追求某一个分类层级更重要。
基于泛基因组的CAG特征解析
泛基因组关注的不是某个物种的一株代表菌,而是这个物种所有已知菌株共同拥有的基因集合。研究重点分析了CAGs(共关联基因簇)。CAG由一组共同出现的蛋白编码基因构成,可以理解为比物种更精细的功能单元。
研究覆盖13种细菌,共分析3711个CAG,并利用来自日本、美国和欧洲的三个独立CRC宏基因组队列进行验证,总体包括379名CRC患者和347名健康对照。
从物种泛基因组到CRC相关gene bin的识别
编辑
值得注意的是,三个队列在具体 gene bin 层面的一致性并不高。作者认为,这可能与测序平台、测序深度、来源人群以及生物学异质性等差异有关。因此,这项研究关注的重点并不是某一个具体 gene bin 能否在不同人群中反复出现,而是不同细菌是否会在更高层面的功能上表现出趋同。
这一点对于菌群检测模型具有重要启发。现实检测中,样本采集、测序深度、个体饮食、药物使用及肠道短期状态,都可能导致部分菌种或基因簇的检测结果发生变化。如果模型过度依赖某一个具体菌种、某一个基因簇或某一个丰度阈值,就可能在不同时间、不同人群或不同检测条件下产生较大偏差。
谷禾健康模型通过海量菌群数据训练,不仅学习单个菌种或基因簇与疾病之间的关系,更重要的是提取多个菌种之间的共同功能、代谢网络和健康状态特征。当某一个菌种在样本中暂时减少,或者某一个功能由其他菌种补偿时,模型可以通过整体功能网络进行综合判断,而不是简单地将局部丰度变化等同于疾病风险变化。
-专职型(Specialists)
这位类基因主要集中在某一个特定菌株谱系中,谱系保守性较高,说明它们更可能长期伴随这一支菌株稳定存在。
-兼职型 (Side hustlers)
这类基因并不固定存在于某一个谱系,而是分散出现在不同菌株中,表现出较强的基因组可塑性。
为了描述这种差异,作者设计了一个单系性评分(monophyly score)。
评分越高,说明某个基因簇越集中在特定进化谱系中;
评分越低,则说明这个基因簇在系统发育树上的分布越分散。
编辑
注:“专职型”和“兼职型”更像是描述谱系分布的两个端点,而不是把所有基因硬性分成两个互斥类别。
普拉梭菌是整篇文章里很有代表性的一个例子。
普拉梭菌(Faecalibacterium prausnitzii)通常被认为是健康相关菌,同时也是重要的产丁酸菌。但这篇研究发现,普拉梭菌内部同时存在健康相关和CRC相关的基因簇。
两者的谱系分布不同。
健康相关CAG具有更高的monophyly score,更符合稳定存在于特定谱系中的专职型特征;
CRC相关CAG则表现出更低的单系性,更接近分散在不同菌株中的兼职型。
这说明,同一种细菌内部可以同时存在不同的功能模块。
编辑
注:这个结果并不意味着CRC相关基因普遍都是“兼职型”。在所有物种中,只有F. prausnitzii表现出明确差异,其他物种在多重校正后并没有出现同样的趋势。CRC相关和健康相关的基因特征中,都可能同时存在两种模式。不同的是这两类特征在不同菌种中的组合和比例。
当作者把不同细菌中的结直肠癌相关CAG一起分析时,出现了一个重要现象:功能趋同(functional convergence)。
虽然这些基因簇来自不同细菌、不同谱系,但其中反复出现了一些相似功能,尤其包括:
T4SS,IV型分泌系统
T4SS涉及细菌间或细菌与宿主之间的物质传递,也与移动遗传元件有关;
TonB依赖性受体
TonB相关系统参与铁等营养物质摄取;
RagB/SusD家族营养摄取蛋白
RagB/SusD则与复杂营养底物的利用有关。
编辑
这些功能并不相同,但有一个共同点:都与细菌在复杂肠道环境中的生存和竞争能力有关。
作者进一步发现,共有14类蛋白家族反复出现在至少5个不同gene bins和多个细菌物种中。
编辑
这提示,CRC相关肠道环境可能并不是选择某一种固定细菌,而是在选择某些适合这一生态位的功能能力。
这正是谷禾健康模型从菌种层面进一步提取功能和代谢网络的理论基础。模型通过海量菌群数据识别不同物种之间重复出现的功能信号,并将这些功能信号与疾病表型、代谢状态及健康轴进行关联。相比依赖单一菌种丰度的检测方式,功能层面的特征通常具有更强的跨个体解释能力,也更不容易受到某个菌种短期波动的影响。
因此,即使个体A和个体B的菌群组成并不完全相同,只要其菌群在营养摄取、铁竞争、代谢转化、宿主互作等方面呈现出相似的功能网络,谷禾健康模型就有可能识别出两者所处的相近疾病相关状态。这种“不同菌种、相似功能、共同预测”的逻辑,有助于提升模型在不同人群中的泛化能力。
Fusobacterium animalis的多重进化策略
Fusobacterium animalis很好地体现了这种复杂性。
研究发现,它的 CRC 相关 gene bins 横跨高、低不同的单系性评分;其中多个基因簇携带 T4SS 相关功能,但这些功能所在的基因簇具有不同的谱系来源。
编辑
这意味着,即使在同一个物种内,与 CRC 相关的功能也可能同时依赖两种模式:
一部分长期保留在特定谱系中;
另一部分更加灵活,可能经历反复获得或丢失。
CRC 相关生态位对“功能能力”的选择,并不一定要求某一个固定菌株在所有个体中扩张。
如果一种菌群特征未来希望用于检测或长期追踪,一个现实问题是:它在同一个人身上是否足够稳定?作者利用纵向样本进一步评估了 pangenome bin 的时间稳定性。
总体上,同一个体不同时间点之间的 gene bin 丰度相关性高于不同个体之间;对大多数研究物种而言,即便经历肠道清洁这样的急性扰动,bin 层面的结构也没有出现大幅变化。这说明,部分菌株/基因层级信号具有一定的个体内持续性。
但稳定性也并非所有菌都一样。Escherichia coli和Fusobacterium animalis的个体内时间相关性相对较低,提示某些菌的基因组构成可能更容易波动。
“时间稳定”并不等于“已经具备诊断价值”:这些信号能否提高 CRC 识别能力,仍然需要在前瞻性人群中与物种水平模型进行直接比较。
同一个人的菌群会变化,但人与人之间的差异往往更大。因此,一个指标是否“异常”,不仅取决于某一次检测值,还与个人长期基线和参照人群有关。未来如果希望提高菌群信号的解释力,横向的人群参照和纵向的个人变化可能需要同时考虑。
作者进一步做了不同物种 gene bins 之间的两两组合分析,希望寻找“单独看不明显、组合后关联增强或减弱”的候选关系。
研究在Yachida队列中对不同物种的pangenome bins进行了两两组合分析,并在logistic回归模型中加入交互项。仅两两组合就拟合了980,001个模型,随后按照交互项的统计显著性排序,选取前200组进行探索性分析。
一旦从单菌、单基因进入组合分析,可比较的可能性会呈指数式增加。 这项研究仅考察gene bin的两两组合,就产生了接近98万个模型;如果继续加入更多菌种、功能、代谢物以及宿主因素,数据维度还会进一步扩大。因此,高维菌群研究困难的是如何从大量可能的组合中区分稳定信号、偶然共现和统计噪声。
1 协同关联,CRC风险增加
F. animalisbin 66与 Clostridium scindens bin 169
最突出的一组是 Fusobacterium animalis bin 66 与 Clostridium scindens bin 169。
在 Yachida 队列的逻辑回归模型中:
两者同时存在时,模型中的CRC概率约为0.91;而只出现其中一个bin时,CRC概率约为0.45。
注:这里的“0.91”是特定队列、特定统计模型中的条件概率,不能解释为“一个人携带这两个基因簇就有 91% 的患癌风险”。
基于已有生物学知识,作者提出假设:
C. scindens 可能通过改变胆汁酸环境,为携带特定功能基因的F. animalis 提供更加适合的生态位,两者进一步形成协同的CRC相关环境。
注:目前这一点仍然只是统计关联和机制假设。仍需要共培养、动物模型和代谢检测进一步验证。
这里还牵出了一条重要的菌群-胆汁酸-宿主共代谢轴。人体首先在肝脏合成初级胆汁酸,进入肠道后,再由部分肠道细菌进一步转化。C. scindens是一种具有较强胆汁酸7α-脱羟基化能力的细菌,可以将初级胆汁酸转化为包括脱氧胆酸(DCA)在内的次级胆汁酸。DCA与DNA损伤和结肠细胞凋亡抑制有关。
胆汁酸因此并不只是帮助脂肪消化的物质,它同时也是能够影响肠道上皮、代谢和信号通路的活性分子。已有研究还发现,饮食改变胆汁酸输入后,也可能进一步改变肠道微生物对胆汁酸的转化。 因此,这类跨物种组合值得关注的地方,不仅是两种菌同时出现,还有它们是否共同塑造了一个不同的代谢环境。
2 健康相关菌,也可能参与CRC组合
普拉梭菌bin 166 和 F. animalisbin 94
这二者同时存在时,CRC关联明显增强。尤其值得注意的是,普拉梭菌通常被视为健康相关菌,但普拉梭菌 bin 166本身属于低丰度、低单系性评分的“兼职型”基因簇。
这个结果再次说明,用“好菌/坏菌”的物种标签概括一个物种,可能会掩盖菌株和基因层面的差异。
3 协同 / 拮抗型基因组合
例如,Eggerthella bolteaebin 345与 Escherichia colibin 583同时存在时,与较低的CRC概率相关。
协同和拮抗的CRC/健康相关基因组箱
编辑
另一方面,E. colibin 79与Ruminococcus torquesbin 59共同存在时,CRC关联又明显增强。
有意思的是,R. torquesbin 59的单系性评分为1.0,是非常典型的“专职型”;而与它协同的E. coli bin 79则属于另一种谱系分布模式。
这些结果提示,CRC相关菌群更像一个由多个功能模块共同组成的生态网络。
注:该研究目前仍属于探索性工作,提供一种“概念验证”式的方法框架,还不能直接等同于可用于临床诊断的新指标。研究只覆盖 13 种细菌,古菌、真菌和病毒并未纳入;作者强调,未来还需要扩大菌种和人群范围,并结合基因组共线性、质粒分析、机制实验及前瞻性队列进一步验证。
这项研究带来的一个重要变化,是将CRC相关菌群的观察尺度,进一步延伸到同一物种内部携带哪些基因、不同细菌是否共享相似功能,以及这些特征之间如何组合出现。
这项科研工作的价值,或许并不在于立即提供一套可直接用于CRC检测的新指标,而在于提出了一种值得进一步验证的研究思路:面对高度复杂且存在显著个体差异的肠道菌群,与其依赖某一个孤立的菌种或功能指标,不如基于大规模、长期积累的真实世界样本,系统识别跨人群、可重复、具有生物学意义的菌群功能模式。只有在足够丰富、多样且持续扩展的样本基础上,才能进一步验证这些功能信号的稳定性、泛化能力及其在疾病预测中的实际价值。
主要参考文献
Lee J, Minot S, Dey N. Pangenome analysis reveals both niche-specific “specialists” and microbial “side hustlers” in colorectal cancer microbiomes. Gut Microbes. 2026 Dec 31;18(1):2728331.
谷禾健康
人类口腔微生物组是一个微生物密集、化学信号持续变化的生态系统。每天刷牙、漱口,背后都有数以百亿计的微生物在牙面、舌背和牙龈沟“分工协作”。它们争夺营养、彼此发送信号,也共同搭建生物膜。不同微生物之间的竞争与协作共同塑造群落结构,并影响宿主健康。
当长期高糖饮食、清洁不足或反复炎症,改变的不仅是单一细菌的数量,更是整个微生物群落的关系网络:多样性下降,变形链球菌、牙龈卟啉单胞菌等潜在致病菌占据优势,而维持稳态的共生链球菌、Rothia 和 Actinomyces 则受到竞争减少。龋齿、牙周炎和牙龈炎等疾病已影响至少数十亿人,口腔微生物群还可能与心血管疾病和神经退行性疾病相关。
究竟是什么让口腔微生物群落从“相安无事”转向“持续失衡”?答案可能不只藏在单一菌群里,也藏在微生物制造的天然产物中。宏基因组研究显示,口腔微生物携带丰富的生物合成基因簇(BGCs),具有生产多样天然产物的巨大潜力。
这些代谢物正被逐渐视为介导微生物相互作用的关键媒介,许多口腔 BGC 与健康或疾病状态相关。它们能够调节细菌附着、生物膜、竞争、铁获取、氧化应激和宿主免疫。研究已在口腔中发现数千至上万个 BGC,且部分基因簇在健康、龋齿和牙周炎状态之间存在差异。
本文将聚焦结构复杂、合成代价较高的非核糖体肽(NRP)和多聚酮(PK),从 mutanofactin、mutanocyclin、mutanobactin、salivabactin 和 enterobactin 出发,追踪它们如何塑造口腔群落,再转向尚未揭示的 BGC 及其调控机制。我们也将进一步追问:口腔菌群检测能否从“检测到哪些菌”,走向“哪些功能正在表达、哪些化学变化正在发生”?
口腔微生物的基因中存在大量能够生产这些化学物质的“基因生产线”,所以研究这些基因簇,有助于理解口腔疾病是如何发生和持续的,也可能帮助发现新的药物或治疗线索。
口腔微生物群是一个持续通过化学互作进行适应的动态共同体,维系着口腔健康与疾病之间的微妙平衡。龋齿、牙周炎与牙龈炎等口腔疾病在全球极为常见,估计至少影响着数十亿人。
近年来,口腔微生物群组成还与心血管及神经退行性疾病等系统性疾病相关,这进一步突显了理解其生化影响的必要性。
口腔疾病通常与局部菌群失衡相关
口腔疾病通常与局部菌群失衡相关:微生物多样性降低,而变形链球菌(Streptococcus mutans)和牙龈卟啉单胞菌(Porphyromonas gingivalis)等潜在致病类群占优势。
相较之下,健康口腔往往具有更丰富且更稳定的共生链球菌群,以及罗氏菌(Rothia)和放线菌(Actinomyces)等。它们分别定植于牙齿表面、舌背与龈沟等不同生态位,并通过形成结构化生物膜而发挥保护或致病作用。高糖饮食、宿主炎症反应及遗传易感性等因素都可能打破这种平衡。
口腔天然产物是致病的关键因子
尽管已广泛研究疾病过程中菌群组成的变化,但群落如何在生化层面转向致病性优势状态的机制仍未明晰。天然产物或特定代谢物是细菌用来调控生长、行为与群落结构的关键小分子。这些分子可为阐明微生物失衡的化学驱动因素以及疾病进展中的关键环节提供路径。
按生物合成来源,天然产物通常包括:多聚酮(PK)、非核糖体肽(NRP)、核糖体合成并经翻译后修饰的肽(RiPP)、萜类、糖类、生物碱、杂合分子等,另外还有一些由基础代谢“衍生出来”的小分子。
要合成某一类天然产物,细菌通常需要一整套相关基因协同工作:这些基因常常会和调控、运输和自我保护(避免被自己产物伤害)等基因一起聚在染色体上的某个区域,形成生物合成基因簇(BGCs)。
注:之所以能用计算方法去找这些“基因包”,是因为在 BGC 中常能观察到一些典型“合成机器”——例如PKS(多聚酮合成酶)、NRPS(非核糖体肽合成酶)和萜烯合酶等线索;把这些信息和 DNA 序列一起分析,就能预测可能存在的 BGC。
★ 健康、龋齿与牙周炎状态下的BGC差异显著
研究者已经在大量口腔细菌基因组与宏基因组数据中系统挖掘到了 BGC 的化学潜力。比如,对461个口腔细菌基因组进行绘图,发现近 5000 个 BGC,并且健康、龋齿和牙周炎三种状态下的 BGC 存在明显差异。
口腔微生物群中包含着多种多样的细菌基因簇
编辑
doi: 10.1128/mBio.00321-19.
进一步在唾液和牙菌斑宏基因组中,对牙周炎患者与健康对照进行比较,识别出超过10700个 BGC。从健康与龋齿来源的宏基因组中识别约 4500 个 BGC,其中将近一半在健康与龋齿的宏转录组数据中呈现显著差异表达。
总体而言,这些结果提示:BGC 编码的“化学工具”很可能不仅参与维持口腔生态稳态,也可能在疾病发生发展过程中起到推动作用。
口腔代谢物也能通过多种方式影响宿主和菌群
至于口腔代谢物,已有研究较清楚地描述了一些“典型分子”,例如短链脂肪酸、氨基酸分解产物、挥发性硫化物和细菌素等。
它们可能通过多种方式影响宿主与菌群:例如刺激炎症、削弱组织结构;同时也能改变局部环境,让某些细菌更容易生存。部分代谢物还能像“窄谱抗菌剂”一样,只针对特定竞争者,帮助优势菌更稳地占据生态位。
相比之下,结构更复杂、合成成本更高的 NRP 和 PK 类天然产物,目前仍缺少像“常见代谢物”那样的系统整合研究。原因之一是它们通常需要更庞大的基因组装(对应更大的 BGC),代谢负担也更高,因此这些分子往往更可能承载更突出、更关键的进化与生态功能。
口腔天然产物和口腔代谢物有什么区别?
口腔产生的天然产物和口腔代谢物都可以是细菌分泌/产生的“小分子”,但在研究上侧重点不同:
1)侧重点不同
口腔代谢物:更偏“代谢产物/末端分子”的概念,通常指在口腔环境中实际被检测到的代谢小分子(例如通过代谢组学识别到的酸类、挥发性硫化物、氨基酸分解产物等)。
口腔天然产物:更偏“生物合成来源”的概念,通常指由微生物(或共生体)通过专门的生物合成通路(常见为 BGC)产出的次级代谢类小分子,常结构更复杂、更具“化学武器/信号分子”属性。
2)生成机制通常不同
天然产物往往对应明确的合成体系:例如 PK、NRP、RiPP、萜类等,背后常有成簇的基因(BGC)与关键酶(如 PKS、NRPS、萜烯合酶)。
代谢物更多反映“基础代谢+环境适应”的结果:糖酵解、氨基酸代谢、脂代谢以及厌氧发酵等都会产生大量代谢终产物,不一定需要典型 BGC。
简单比喻:代谢物更像“日常加工后的产物清单”;天然产物更像“特定工厂按配方定制的功能性化学品”。
3)结构复杂度与功能定位
天然产物通常结构更复杂、合成代价更高,常与竞争/协作、生态位塑造、抗性或抑菌等功能相关(当然也有例外)。
代谢物结构相对更“基础”,功能可能同样重要,但更常体现为改变pH、引发炎症、影响营养环境、产生气味/刺激性等。
4)是否有重叠?
有
现实中一些天然产物也会在代谢物检测中出现;但许多代谢物可能不被归类为“天然产物”,因为它们并非来自典型 BGC 的次级代谢体系,或结构/机制不满足“天然产物”研究框架。
目前得到充分表征的口腔多聚酮(PK)、非核糖体肽(NRP)及其杂合代谢物,绝大多数来自革兰阳性兼性厌氧菌——变形链球菌(Streptococcus mutans)。它虽以形成致龋生物膜著称,却也是 NRP、PK 与 RiPP 等生物活性天然产物的丰富来源。
非核糖体肽类物质以及多聚酮化合物
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下表概览本节的六类代表性分子;随后将沿“分子如何改变群落”的顺序展开。
编辑
Mutanofactin —促进口腔早期定植的天然产物
2021 年,研究人员发现mutanofactins——一类由少数变形链球菌临床分离株产生、能促进生物膜形成的脂肽。
该家族包含五种两亲性脂肽,由 N-酰基脂肪酸部分连接短肽骨架。主要代谢物 Muf-697 的末端 PK 部分含噻唑取代基;Muf-458、-539、-541 与 -607 则具有不同末端基团。机制研究表明,Muf-697 可非特异性结合于变形链球菌细胞表面,提高表面疏水性,并通过物理化学作用促进附着和后续生物膜形成。
其生物合成呈典型装配线模式:先以十碳-2,4,6,8-四烯酰链起始修饰 L-苯丙氨酸,再经两个 NRPS 模块与两个 PKS 模块延伸;新生链最终在缩合域介导的罕见末端酯化中引入 L-乳酸并释放,形成 Muf-697。装配线不同步骤的水解会产生多种旁路产物。
mutanofactin的生物合成及促进生物膜形成的能力
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanofactins能促进链球菌等形成生物膜并定植与口腔
在完成 mutanofactins 全合成并开展微生物学分析后发现,Muf-697 能促进变形链球菌及戈登链球菌、口腔链球菌等早期定植者形成生物膜,对具核梭杆菌与不动杆菌的影响则很小,提示它对早期群落构建具有选择性。
尤为关键的是,该分子能够使黏蛋白包被表面发生膨胀,从而帮助变形链球菌附着于原本难以定植的黏蛋白层。muf BGC 在早期指数生长期表达达到峰值,恰好对应初始附着的关键窗口,也支持其在多微生物生物膜建立中的作用。
Mutanocyclin与Reutericyclin —抗菌前体到功能再利用的天然产物
含四元酸(tetramic acid)的天然产物以 2,4-吡咯烷二酮核心为特征,在多种生态位中可表现抗菌、抗真菌和细胞毒性。
★ Reutericyclins具有抗菌性,还能减轻体重增长
Reutericyclins 就是一种此类化合物,最初发现于肠道微生物罗伊氏乳杆菌,由混合型 NRPS–PKS 基因簇编码,包含 A–C 三种 N 连接脂肪酰侧链长度不同的同系物。它们是强效质子离子载体,可在纳摩尔浓度破坏广谱革兰阳性菌的跨膜 pH 梯度;在小鼠中还被报道可减轻利培酮相关体重增加并引起与瘦型相关的微生物组变化。
mutanocyclin的生物合成及其生物活性
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanocyclin影响免疫反应、降低变形链球菌丰度
同源 muc 基因簇在一些(约14%)已测序的变形链球菌里能找到。研究显示,带有 muc 的菌株通常不主要产出 reutericyclin,而是生成缺少脂酰侧链的 mutanocyclin。
这条脂酰侧链很关键:当它缺失时,mutanocyclin 的抑菌/杀菌能力会明显减弱——它往往只对少数口腔细菌表现出较弱作用;而 reutericyclin 则更“强势”,能在实验性的合成生物膜里显著降低接近 40 个口腔细菌类群的丰度,从而明显改变群落结构。少数仍携带 muc 的菌株也能产生 reutericyclin,但其产生量通常比 mutanocyclin 低约一个数量级。
mutanocyclin 可能被“再利用”于不同生态功能:它不仅可能影响免疫反应或屏障环境(如在 Matrigel 栓实验中降低白细胞浸润),还可能通过影响信号通路(例如调节 PKA 亚基 Tpk2 及下游 SFL1)来抑制白色念珠菌的菌丝形成。但它对生态的作用并非单向:近期多物种生物膜研究表明,mutanocyclin 可能会降低变形链球菌丰度,同时也能增强戈登链球菌、血链球菌等对变形链球菌的拮抗效应。也就是说,它更像是在塑造“群落博弈”的规则,而不是单纯地只杀一种细菌。
在机制上,reutericyclin 和 mutanocyclin都来自同一条“混合装配线”:NRPS–PKS共同参与合成,先形成带有吡咯烷-2,4-二酮核心的骨架。接着,reutericyclin的前体会先被氨基酸酰化加上特定修饰;然后由 mucF 编码的脱酰化酶把脂酰基等部分“去掉”,生成 mutanocyclin。
Mutanobactin —结构多样、功能多面的天然产物
在已表征的变形链球菌特殊代谢物中,mutanobactin 是功能谱最广的一类。对应 mub BGC 在超过 30% 的变形链球菌基因组中存在,显示出潜在的进化优势。此前研究已关注其结构、对白色念珠菌菌丝形成的抑制,以及与氧化应激耐受相关的性质。
注:迄今已发现逾 50 种同系物。Mub-A 至 Mub-D 最丰富且结构已解析。Mub-A 至 Mub-C 含有罕见的 1,4-噻氮杂环庚烷环;Mub-D 不具该结构,而有 7-甲基取代。其大环结构源于具有一定“宽容性”的 NRPS–PKS 装配线:末端还原域释放高反应性线性醛中间体,后者自发进行非酶促大环化,产生所观察到的化学多样性。
★ Mutanobactin高浓度下能抑制戈登链球菌、不动杆菌等
Mutanobactin的作用不仅限于抗氧化耐受。Mub-A、Mub-B 和 Mub-D 可抑制白色念珠菌的菌丝形成,并下调与毒力相关的 ECE1 和 SAP2;其中半数最大抑制浓度约为 5.3 μM。去除脂质侧链的截短类似物活性显著降低,说明脂质结构域至关重要。
较高浓度(通常 >50 μM)下,它们还可对戈登链球菌、不动杆菌及口腔放线菌产生抗菌作用。
★ Mutanobactin 也可能调节宿主反应
Mub-B 被报道可改变多种促炎细胞因子的水平;Mub-D 在约 5 μM 时可促进人牙髓干细胞与人骨髓干细胞的增殖和分化。
综合来看,这类分子可能同时参与变形链球菌毒力与宿主互作。但其在天然多物种口腔群落以及真实生理浓度下的具体作用仍需进一步研究。
Mutanoclumpin —协同驱动生物膜与龋齿的天然产物
最新表征的变形链球菌 NRP–PK 杂合 BGC 编码 mutanoclumpins。该途径产生两种结构不同的代谢物 MC-584 与 MC-586;二者在可能由末端还原酶域催化的最终大环化步骤分叉。
★ mutanoclumpins可能是变形链球菌致龋关键
人牙菌斑的宏基因组与宏转录组分析显示,mutanoclumpin BGC(mcg)与龋齿相关;更值得注意的是,mcg 表达与龋齿相关样本的关联强于变形链球菌自身的 16S 丰度。这一发现强调,功能活性有时比物种是否存在更能反映疾病状态。
MC-584 与 MC-586 需要共同存在,才能恢复 mcg 敲除突变体的生物膜形成,显示出双代谢物协同机制。两种化合物分别与变形链球菌细胞表面结合,并诱导不同的多细胞形态,共同构成生物膜结构。
该研究进一步提示:理解口腔致病性,不能只追踪单一菌或单一代谢物,也应解析由 NRPS/PKS 产生的生物膜代谢物之间的协调作用。
Salivabactin:—源自口腔益生菌产生的天然产物
Salivabactin 由人源口腔益生菌唾液链球菌 K12(Streptococcus salivarius K12)产生,与其知名的抗菌 RiPP 类 salivaricins 一同构成抗菌武器库;相关 BGC 均位于 pSsK12 巨型质粒上。
★ Salivabactin对多种革兰阳性病原菌具有活性
该分子在体内外对多种革兰阳性病原体表现强效活性,尤其针对化脓性链球菌(A 组链球菌,GAS)。体外对 GAS 的 MIC 约为 2 μg/mL,杀菌效力可与青霉素 G相当;它还抑制肺炎链球菌、变形链球菌和金黄色葡萄球菌。
唾液分泌素的生物合成、调控机制
编辑
doi: 10.1146/annurev-biochem-051024-050248.
在 GAS 坏死性肌炎小鼠肌内感染模型中,纯化 salivabactin 的保护效应与同剂量青霉素 G对照相当。尽管其体外对革兰阴性菌无活性,在大肠杆菌异源生产时却显示明显细胞毒性,提示跨膜转运可能限制了其对革兰阴性菌的抗生素活性。
注:salivabactin 由 sar 基因簇编码的 trans-酰基转移酶型 PKS–NRPS 杂合装配线合成,核心酶包括 SarD、SarE、SarF、SarG、SarH 和 SarJ。异源表达及纯化酶体外重构证明,这六种酶构成合成所需的最小机器。其末端硫酯酶域属于新亚家族,可连续催化水解、脱羧和 β-羟基消除,生成决定其独特结构的末端二烯部分。复杂的合成机制体现了唾液链球菌 K12 作为多功能抗生素生产者的潜力。
Enterobactin —一种可作为高效铁载体的天然产物
黏液罗氏菌(Rothia mucilaginosa)是常见口腔成员,近年被证实为首个产生儿茶酚型铁载体 enterobactin 的口腔共生菌;此前,人们认为该分子主要局限于致病性肠道细菌。Enterobactin是自然界已知铁亲和力最高的分子之一。这种超高亲和力使细菌即使在宿主以封存铁为防御策略时也能获取铁,因此与微生物竞争和宿主营养免疫调节密切相关。
★ 罗氏菌产生的enterobactin特异性影响不同链球菌
基因组学、代谢组学和核磁共振分析共同证实:黏液罗氏菌 ATCC25296 可在营养受限条件下通过 NRPS 途径合成 enterobactin。尽管其 BGC 与大肠杆菌同源性很低,仅 NRPS 基因与大肠杆菌 EntE–EntB 融合蛋白有约 41% 相似性,但 NMR 显示口腔来源产物保留典型结构——由2,3-二羟基苯甲酰-L-丝氨酸构成的环状三聚酯。
类似 BGC 还存在于龋齿罗氏菌(Rothia dentocariosa)与空气罗氏菌(Rothia aeria),提示该途径在口腔罗氏菌属中较广泛。初步研究显示,黏液罗氏菌来源 enterobactin 可间接对抗致龋变形链球菌与致病金黄色葡萄球菌,同时又对共生菌产生高度物种特异性作用:唾液链球菌与戈登链球菌受益,口腔链球菌生长降低,而血链球菌不受影响。
小编的话
本节围绕变形链球菌及口腔共生菌的 NRPS–PKS 杂合代谢物展开:mutanofactins 用于“早期粘附与生物膜形成”,mutanocyclin/reutericyclin 则在“抗菌与免疫调节”之间切换,而 mutanobactin、mutanoclumpin 进一步指向更复杂的功能协同。
值得注意的是,许多现象并不完全由单一菌种决定,反而更受关键代谢物的表达水平牵引:当 BGC 活性与龋齿相关性强于 16S 丰度时,疾病更像是被代谢网络驱动而非单纯被物种“占领”。小编认为,未来口腔致病机制研究不应只追踪“谁来了”,还要追问“它在什么营养与生态压力下,用了哪些物质”。这样才能真正理解天然产物如何把共生转化为致病。
目前我们已经弄清并能“点名”的口腔 NRP/PK 天然产物其实只是很小的一部分。原因在于:口腔里很多微生物的基因组体量不大,通常只有约2–3 Mbp;而一些天然产物“生产能手”(如链霉菌、伯克霍尔德菌)常见基因组能达到约 7 Mbp。基因组更小,往往意味着潜在的 BGC(生物合成基因簇) 可能也相对更少。
不过,即便在这种“基因空间更紧”的情况下,NRP/PK 的基因簇仍然占了不小的比重,这说明它们很可能并不是多余的装饰品,而是对生存与适应很重要、也很有进化价值。
基于下面对变形链球菌、罗氏菌属、具核梭杆菌这三类口腔关键菌群的梳理,我们可以得到一个更清晰的认识:口腔天然产物并不只是由少数“已经被命名的致龋分子”构成,而更像是一套由许多仍在等待解析的 NRPS/PKS 基因簇 共同组成的化学工具箱;这些产物会在不同的生态位、不同的时间节点被“启动”,从而一起塑造口腔群落的状态。
变形链球菌:未表征的调控潜能
除前述已知代谢物外,变形链球菌还携带多个未表征的 NRPS/PKS BGC。代表性例子包括 mutantioxidin BGC(mao)和 BGC2。
★ mao有助于变性链球菌的氧化应激耐受
2010 年对 UA140 和 MT4653 菌株的研究发现,mao 编码一种与氧化应激耐受相关的黄色色素。
mao 约存在于20% 的变形链球菌分离株,并在植物相关乳酸乳球菌及鼻腔定植表皮葡萄球菌中发现同源 BGC。破坏 mao 的变形链球菌突变株暴露于 O2 或 H2O2 时滞后期延长、倍增变慢,提示 mutantioxidin 与氧化应激耐受有关;乳酸乳球菌 KF147 同源 BGC 中 4′-磷酸泛酰巯基乙胺转移酶基因缺失也会显著降低细胞在氧化压力下的存活能力。
★ BGC2可能参与生物膜形成后的功能调控
BGC2 也是一套“基因配方”,由18个基因协作组成,属于 NRPS–PKS 这种混合型合成系统,且常常和 mutanofactin 的 BGC1 同时存在。两者的启动时间不一样:BGC1 更偏向于在细菌刚开始“贴上去”形成附着时就表达;而 BGC2 往往在生物膜逐步建立、进入后期时表达明显增强。
不过,研究者通过敲除 BGC2 发现,生物膜的总体结构和稳定性并没有明显改变。这提示 BGC2 可能并不只是“搭建生物膜本身”的关键零件,而更可能参与生物膜形成后的某些调控或功能细节。
代表性未表征的非核糖体肽类及聚酮类化合物BGCs
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下一步就是弄清 BGC2 主要产物是什么,从而更好理解它究竟在发挥什么作用,以及为什么在同一菌株里 BGC1 与 BGC2 会一起共存?
Rothia:与健康相关、蕴藏着丰富的天然产物潜能
罗氏菌属(Rothia)是人类口腔与呼吸道常见的非运动性、不产孢、革兰阳性球杆菌,以兼性厌氧方式生长。口腔中较常见的三种为空气罗氏菌(R.aeria)、龋齿罗氏菌(R.dentocariosa)和黏液罗氏菌(R.mucilaginosa):前两者多见于牙菌斑,黏液罗氏菌则是舌背微生物群的重要成员,可形成广泛斑块。
尽管 Rothia 可在临床感染中作为机会性病原体出现,但它通常是健康口腔的关键组成,丰度往往与牙周病负相关;黏液罗氏菌和空气罗氏菌常见于低龋人群,而龋齿罗氏菌则检出于高龋人群。空气罗氏菌还被提出可作为还原硝酸盐的益生菌,与硝酸盐益生元组合用于牙周炎干预。
★ Rothia 潜在天然产物助力口腔稳态
基因组挖掘揭示其天然产物能力远比预期丰富。对 155 个 Rothia 基因组的比较研究发现,80% 至少携带一个 BGC,并将 NRP BGC 分为四个家族。其中一个主要家族是缬氨霉素抗生素 BGC;另一类为见于人源黏液、龋齿和空气罗氏菌的 enterobactin BGC。
研究还发现一种在 Rothia nasisuis与Rothia nasimurium 中常见的新型 enterobactin-like NRP BGC:它虽与 enterobactin BGC 共享保守基因,却编码不同 NRPS 核心,因而被推测产生结构不同的金属结合代谢物以促进定植。
此外,一株来自人类口咽的龋齿罗氏菌对致病奈瑟菌具有明确抗菌活性,其基因组包含六个 BGC,包括 enterobactin BGC 与一个 II 型 PKS BGC。这些线索表明,NRPS/PKS 可能是 Rothia 适应口腔微环境的重要组成;其编码代谢物的结构解析,有望阐明微生物—微生物与微生物—宿主互作的分子基础。
具核梭杆菌:生物膜“桥梁菌”的新兴合成潜力
具核梭杆菌(Fusobacterium nucleatum)既是人类口腔常见成员,也与牙周疾病相关,是一种革兰阴性、长杆状厌氧菌。它在口腔生物膜中扮演“桥梁菌”:连接早期和晚期定植者,促进生物膜成熟与稳定。
★ 健康相关梭杆菌亚种的NRPS产物潜能
它可与链球菌、放线菌等早期定植者,与韦荣菌、放线杆菌、拟杆菌、二氧化碳嗜纤维菌(Capnocytophaga)、卟啉单胞菌等晚期定植者,以及白色念珠菌共聚集。不同亚种与健康/疾病的关联也不相同:虽然F.nuclearum的亚种集中在牙周病的部位,但F.polymorphum和F.vincentii的亚种通常存在于健康的口腔中。
其遗传与代谢多样性仍刚开始被解析。泛基因组研究显示,天然产物 BGC,尤其 NRPS 编码簇,存在亚种特异性分布:NRPS 簇 1 在各亚种中高度保守,而另一个 NRPS 簇 2 则同时存在于多形亚种与文森特亚种。鉴于这两种亚种在健康口腔中的常见性,解析其 NRPS 产物及功能,可能为理解其潜在健康贡献带来帮助。
小编提醒
现有研究表明,口腔微生物虽因基因组较小而携带的 BGC 数量有限,但 NRPS/PKS 基因簇仍在多个关键菌群中稳定存在,说明其产物可能具有重要的生态价值。
变形链球菌的 mao 与 BGC2 分别可能参与氧化应激耐受和生物膜后期调控;罗氏菌的相关基因簇可能通过金属获取、抑制竞争菌等方式促进定植并维持口腔稳态;具核梭杆菌中呈亚种特异性分布的 NRPS 簇,则可能与健康或疾病相关生态位的分化有关。
由此推测,口腔天然产物的作用并非局限于“抗菌”,而可能涉及应激防御、营养竞争、群落交流及宿主互作。未来应结合代谢组学、空间转录组学和基因敲除实验,明确这些基因簇在特定时间与微环境中的产物及功能,从而将“基因组潜力”真正转化为对口腔生态机制的理解。
与口腔菌群检测的潜在衔接:从“群落图谱”走向“功能假设”
这篇文章最重要的一点在于,把关注点从“哪些菌变多或变少”推进到“哪些功能正在被表达、哪些化学分子正在改变生态位”。因此,若将谷禾口腔菌群检测作为观察口腔微生态的入口,其结果可在不越过检测能力边界的前提下,被组织为以下逐层递进的解释框架。
编辑
具体而言,若检测结果提示变形链球菌相关生态位发生改变,可在研究层面提出与 mutanofactin、mutanocyclin、mutanobactin 或 mutanoclumpin 相关的生物膜形成、应激适应和跨物种互作假设;若罗氏菌相关类群处于值得关注的变化状态,则可进一步追问其铁获取与共生竞争的功能背景;而具核梭杆菌的亚种与功能簇分布,则可为“桥梁菌”如何参与群落成熟提供探索线索。这里的关键词是“提出假设”,而不是从物种丰度直接推断某一种代谢物的存在或疾病结论。
对检测解读而言,最有价值的实践并非把某一菌简单标记为“好”或“坏”,而是把样本置回生态网络:采样部位、龋齿/牙周状态、饮食与口腔环境、群落多样性、潜在功能、以及必要时的复测趋势,都应共同进入判断。与本文强调的多组学方向相一致,口腔菌群检测可作为一个初始“群落地图”;当研究或健康管理问题需要更强的功能证据时,再由宏基因组、宏转录组、靶向代谢组或空间成像逐层验证。
本文所呈现的并不是一张简单的“有益菌—有害菌”名单,而是一幅由分子互作编织而成的口腔生态图景。变形链球菌产生的 mutanofactin、mutanocyclin、mutanobactin 和 mutanoclumpins,可参与附着、生物膜构建、抗氧化与跨物种竞争;口腔益生菌唾液链球菌 K12产生的 salivabactin,展示了抗菌分子与 pH 环境、群体感应之间的精细配合;Rothia 产生的 enterobactin,则说明共生菌也能通过铁获取和物种特异性互作影响群落。NRP/PK 代谢物因此连接起生物膜、营养、竞争、宿主免疫与疾病表型,并可能借助 BGC 的水平转移和代谢“串话”跨越物种边界。
这也改变了我们理解口腔菌群检测的方式。一次检测看到的菌群丰度,更像是一张“群落地图”,它告诉我们哪些菌群可能在,却未必能说明谁正在表达功能、谁正在释放代谢物。对谷禾口腔菌群检测结果的解读,也应沿着这一思路推进:在物种组成之外,结合样本部位、临床表型与复测趋势;在检测能力允许时,再进一步关注 BGC、代谢组等功能证据。
当口腔健康被看作一个动态生态过程,成为连接群落结构、化学功能和时间变化的观察窗口。谷禾健康关注的,不只是“有哪些菌”,更是这些菌共同构成了怎样的微生态,以及它们可能参与哪些重要功能。依托长期积累的中国人群口腔与肠道菌群数据库,16S检测基础上,结合菌群结构和潜在功能代谢进行综合解读,帮助用户避免只盯着单个“有益菌”或“有害菌”,而是从整体生态和动态变化的角度理解检测结果。
从口腔到肠道,菌群检测的意义正在从“看丰度”走向“看生态、看功能、看趋势”。未来,随着代谢组学、BGC分析、转录组和蛋白等技术的发展,我们将能够更深入地回答“谁在场、谁在发挥作用、产生了什么、如何影响健康”等问题。现阶段,谷禾希望通过更丰富的人群数据库、更规范的检测技术和更清晰的报告解读,为用户建立一扇认识自身微生态的窗口,让检测结果真正服务于长期、科学、个体化的健康管理。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Loop Yao M, Dai Y, Zhang W. Natural Products from the Oral Microbiome. Annu Rev Biochem. 2026 Jun;95(1):569-593.
Ma Z , Zuo T , Frey N , Rangrez AY. 2024 . A systematic framework for understanding the microbiome in human health and disease: from basic principles to clinical translation . Signal Transduct. Target. Ther. 9 ( 1 ): 237 10.1038/s41392-024-01946-6
Huttenhower C , Gevers D , Knight R , Abubucker S , Badger JH , et al. 2012 . Structure, function and diversity of the healthy human microbiome . Nature 486 ( 7402 ): 207 – 14 10.1038/nature11234
Gancz AS , Weyrich LS. 2023 . Studying ancient human oral microbiomes could yield insights into the evolutionary history of noncommunicable diseases . F1000Research . 12 : 109 10.12688/f1000research.129036.2
Jain N , Dutt U , Radenkov I , Jain S. 2024 . WHO’s global oral health status report 2022: actions, discussion and implementation . Oral Dis . 30 ( 2 ): 73 – 79 10.1111/odi.14516
Adil NA , Omo-Erigbe C , Yadav H , Jain S. 2025 . The oral–gut microbiome–brain axis in cognition . Microorganisms 13 ( 4 ): 814 10.3390/microorganisms13040814
Peng X , Cheng L , You Y , Tang C , Ren B , et al. 2022 . Oral microbiota in human systematic diseases . Int. J. Oral Sci. 14 ( 1 ): 14 10.1038/s41368-022-00163-7
Hajishengallis G , Lamont RJ , Koo H. 2023 . Oral polymicrobial communities: assembly, function, and impact on diseases . Cell Host Microbe 31 ( 4 ): 528 – 38 10.1016/j.chom.2023.02.009
谷禾健康
普雷沃氏菌属(Prevotella)在肠道内占据着极其特殊而复杂的地位。作为拟杆菌门的重要基石成员,普雷沃氏菌广泛定植于人群的肠道、口腔及泌尿生殖道,并因其卓越的复杂植物性碳水化合物分解能力,被确立为非西方化传统高纤维饮食人群肠道微生态的核心代表(普雷沃氏菌型)。
普雷沃氏菌在医学界呈现出令人困惑的“功能悖论”与“双刃剑”效应:一方面,它被视为发酵膳食纤维、合成保护性短链脂肪酸并维护宿主代谢与黏膜稳态的基石有益菌;另一方面,多项临床与流行病学研究将其与牙周炎、细菌性阴道病、类风湿性关节炎、代谢综合征以及胃肠道恶性肿瘤的恶化直接关联。
这种“天使与恶魔”并存的矛盾现象,使普雷沃氏菌属成为微生物学界最引人入胜、也最具转化挑战的研究对象之一。
随着宏基因组学与高通量测序的普及,人们逐渐解开了其“属水平丰度”背后的复杂性。研究者发现,普雷沃氏菌属并不是一个功能完全一致的整体,不同物种、不同菌株之间在碳水化合物利用、黏液降解、代谢产物生成、宿主黏附以及免疫调控等方面存在显著差异。换言之,“普雷沃氏菌增多”本身并不能直接等同于健康,也不能简单地被视为疾病标志。
菌株、饮食、群落、位置
决定功能方向的第一层,饮食提供了什么底物
微生物的功能都需要底物。一个拥有复杂多糖发酵能力的菌株,生活在富含阿拉伯木聚糖、果聚糖和其他可发酵纤维的肠道里,与长期生活在低纤维、高脂肪、高动物蛋白环境中的同类,代谢状态并不相同。
欧美人群的多是高脂代谢菌株,东亚人群多为谷物纤维代谢菌株。
同样一套代谢机器,输入不同,输出自然不同
高纤维饮食提供大量植物多糖(长期摄入全谷物、豆类、根茎、蔬菜等食物),容易把整个生态系统的碳流推向发酵和短链脂肪酸网络。
西方化饮食则改变可利用底物结构(高脂、高动物蛋白、低纤维饮食),也改变胆汁酸、黏液层、氧化还原状态和菌群竞争关系。
注:其他因素比如肠道转运速度会影响细菌可利用底物和停留时间;黏膜通透性决定细菌是否容易接触免疫系统;胆汁酸组成改变不同菌的竞争优势;慢性炎症提高硝酸盐、ROS 等电子受体水平;抗生素会突然清空部分竞争者;质子泵抑制剂改变胃酸屏障…这些背后都是很具体的一整套适合某些菌株生存的宿主环境。
决定功能方向的第二层,“邻居”改变它发挥作用的方式
真实肠道里没有任何细菌独自生活。
普雷沃氏菌周围可能是具核梭杆菌,也可能是普拉梭菌;可能处在慢性炎症已经形成的菌群网络中,也可能生活在一个短链脂肪酸生产和交叉喂养高度活跃的稳定社区里。
谷禾凭借专利菌群注释方法,可以基于菌群结构来精细化推断区分近似菌种,实现普雷沃氏菌的细分分型。
它所在生态网络允许什么样的代谢关系存在
如果P. intermedia与Fusobacterium nucleatum同时富集,炎症信号、上皮屏障破坏和免疫抑制可能相互叠加。反过来,普雷沃氏菌产生的乙酸、琥珀酸等中间代谢物,也可以成为其他共生菌的底物,经交叉喂养继续转化为丁酸。
这时候,即使两份肠道菌群检测报告同时都显示“Prevotella丰度占比10%”,其生态含义就不同了。
编辑
决定功能方向的第三层,它住在哪里,决定它面对什么生态位
微生物拥有自己的基因组,但它表现出来的功能,是基因组与所在组织共同“计算”的结果。
P. intermedia在牙周袋里,与它出现在健康结肠腔内,并不是同一件事。
牙龈沟有血红素、炎症渗出、氧化还原改变和持续的组织损伤;
结肠则有厚厚的黏液层、极低氧环境、不同的碳源以及高度组织化的黏膜免疫系统。
食物底物、短链脂肪酸、琥珀酸等
它的核心竞争力,是处理别人吃不动的复杂碳水
普雷沃氏菌属最值得关注的基础生物学,是它对复杂碳水化合物的处理能力。
很多普雷沃氏菌属的基因组里存在成套的多糖利用位点(Polysaccharide Utilization Loci,PULs)。
简单说,一套 PUL 不是单独的一种酶,而是一整套从“识别-抓取-切割-运输-继续降解”串在一起的系统。
外膜上的 SusD 样蛋白负责识别特定多糖,邻近糖苷水解酶把大分子切成较短片段,SusC 类转运蛋白再把寡糖送进周质空间,后续脱支酶和水解酶继续拆解,最终送入中心碳代谢和发酵网络。
因此,高纤维饮食与普雷沃氏菌属丰度之间的关系,本质上是一场生态选择——谁最擅长利用每天源源不断进入肠道的底物,谁就更容易获得增长优势。
高纤维饮食之后,看这些底物最终被怎样利用
复杂多糖经普雷沃氏菌处理之后,可以进入琥珀酸途径,生成乙酸、丙酸等代谢产物;某些与保护性表型相关的菌株,如P. melaninogenica、P. rothiae,又与丁酸相关的代谢网络联系在一起。
这些代谢物随后被宿主上皮吸收,也可能被其他细菌继续利用。
这意味着,“普雷沃氏菌属丰度上升”只是生态变化的第一层。再往下一层,需要看它是否伴随丙酸、丁酸等功能产物增加;继续往下,还可以观察宿主屏障、免疫细胞和代谢表型是否随之改变。
这也是为什么,单纯说“吃纤维可以增加某一种菌”其实略显粗糙。更需要观察的是,碳最终流向哪里。
发酵能力相似,代谢输出可以完全不同
琥珀酸在这里尤其有意思。
它既可以是细菌代谢网络中的正常中间产物,也可以在特定失衡状态下大量积累。研究表明,过多琥珀酸进入上皮细胞后,可影响 HIF-1α 稳定性以及细胞应激状态,并进一步牵动内质网应激和炎症反应。
于是,一个原本属于“碳水发酵”的代谢节点,开始与上皮损伤和慢性炎症连接起来。
这就是微生物代谢研究里一个很重要的思维方式:同一种代谢物,在不同浓度、不同组织位置以及不同宿主状态下,可能产生完全不同的生物学效应。
短链脂肪酸如此,琥珀酸也是如此。
P. copri 的争议,还提示了另一条代谢分叉:支链氨基酸
在部分菌株中,与亮氨酸、异亮氨酸等支链氨基酸合成相关的基因更丰富;在特定饮食和宿主代谢背景下,这类代谢能力被认为可能参与胰岛素抵抗相关表型。
也就是说,讨论P. copri时,还需要看“它是哪一个株系、携带哪些代谢模块”。
从复杂多糖到短链脂肪酸,从琥珀酸到支链脂肪酸,普雷沃氏菌更像一个具有高度可塑性的代谢平台。
环境决定哪一套程序获得优势。
想了解更多细节的朋友可以滑动阅览:
普雷沃氏菌属于拟杆菌门、拟杆菌纲、拟杆菌目、普雷沃氏菌科,多为革兰氏阴性、无芽孢、无鞭毛的专性厌氧杆菌。
其外膜含 LPS;部分物种具有 IX 型分泌系统(T9SS),可将黏附蛋白、蛋白水解酶及其他底物转运至细胞表面,部分分子也可通过外膜囊泡(OMVs)进入周围环境。
不同物种和菌株基因组差异较大,部分菌株还携带 β-内酰胺、大环内酯、四环素相关抗性基因及可移动遗传元件。
对于理解炎症和菌株安全性,以上这些结构特征也很重要。
<向上滑动阅览>
前面这些菌株、饮食和群落差异,最终会落到宿主身上。
在高膳食纤维环境中,部分 Prevotella参与复杂碳水发酵,产生乙酸、丙酸、琥珀酸等代谢物,并通过交叉喂养支持其他产丁酸菌,从而提高整个群落的短链脂肪酸输出。增加的丁酸等短链脂肪酸,有利于维持肠屏障和免疫稳态。
编辑
另一方向上,某些促炎相关Prevotella 菌株可以通过 LPS 和其他微生物组分激活TLR4/NF-κB、TLR2-Th17-IL-17 等炎症通路;琥珀酸等代谢变化还可能增加上皮应激和屏障损伤。持续的炎症与屏障破坏相互强化,局部环境便逐渐从短暂免疫反应转向慢性炎症。
编辑
doi.org/10.3389/fonc.2026.1855577
当这种促炎状态长期存在,它又会怎样进入肿瘤生态?
从单向作用到生态反馈
肿瘤组织自己就是一个特殊生态位。
这里有缺氧、有坏死、有异常血管、有代谢重编程,还有大量功能失调的免疫细胞。这样的环境可以反过来筛选适合在其中生存的细菌。
编辑
某些细菌促进炎症和组织损伤,组织变化又为这些细菌提供新的生态位;细菌继续改变局部代谢与免疫状态,肿瘤细胞也在不断重塑自己的周围环境。
因此,在肿瘤组织里发现普雷沃氏菌属,既可能记录肿瘤生态环境已经发生改变,也可能意味着其中某些菌株参与维持这种环境。
编辑
doi.org/10.3389/fonc.2026.1855577
它经常和具核梭杆菌一起出现
结直肠癌微生物学里,具核梭杆菌(Fusobacterium nucleatum)已经被研究多年。
它拥有FadA、Fap2等黏附和免疫调节相关分子,可以影响 E-cadherin/Wnt-β-catenin 通路、NK/T 细胞功能以及髓系抑制细胞募集。
有意思的是,一些肿瘤样本中 P. intermedia、P. nigrescens 等口源性普雷沃氏菌会和具核梭杆菌共同富集。
两者一旦进入同一个病灶,作用可能发生叠加
具核梭杆菌提供强黏附和免疫逃逸能力
普雷沃氏菌则可能增强蛋白水解、炎症和屏障破坏;
NF-κB、NLRP3、Wnt/β-catenin、STAT3 等信号网络因此彼此衔接。
编辑
doi.org/10.3389/fonc.2026.1855577
这类“微生物协同致癌”证据在体外实验、动物研究以及部分人群观察中都已出现,但人体层面的完整因果链仍需要纵向和干预研究继续验证。
这其实比寻找“某一种癌菌”更接近肿瘤真实生态:
肿瘤里值得研究的单位,很可能不是一种菌,而是一组协同工作的微生物网络。
口-肠轴与异位定植
每天都有大量口腔细菌随唾液进入消化道。大多数时候,它们难以在稳定的下消化道生态系统里建立长期优势。
但牙周炎、胃肠屏障损伤、局部炎症、药物和菌群失衡会改变这一门槛。
编辑
doi.org/10.3389/fonc.2026.1855577
P. intermedia、P. nigrescens等口源菌就可能通过吞咽进入消化道,也可能在牙龈屏障破损时进入循环。对于已经具有坏死、缺氧和黏膜结构破坏的肿瘤组织,这些菌获得了定植机会(此前没机会定植)。
微生物影响肿瘤,还深入到表观遗传层面
慢性炎症不仅改变细胞因子浓度,也会影响宿主细胞的转录和表观遗传程序。在普雷沃氏菌相关研究中:
一条路线涉及 DNA 甲基化
长期 IL-6、IL-1β 等炎症信号可影响 DNMT 等 DNA 甲基转移酶,从而改变包括 CDKN2A/p16 在内的抑癌相关基因表达。
另一条更前沿的路线涉及 m6A RNA 修饰
已有研究把普雷沃氏菌相关炎症环境与METTL3 上调联系起来;METTL3 介导的 m6A 修饰可以改变 c-Myc、STAT3 等转录本稳定性,也与 PD-L1 mRNA 稳定性及免疫逃逸相关。
它出现在癌变过程的哪一步?
结直肠癌研究里,P. intermedia 是目前相对受关注的物种之一。
2022 年的一项研究在结直肠腺癌组织中发现P. intermedia富集,并观察到它与具核梭杆菌共同存在时,对癌细胞迁移和侵袭表现出叠加效应。随后还有研究在控制肠道转运时间、粪便钙卫蛋白和 BMI 等混杂因素后,继续观察到P. intermedia与结直肠癌的相关性。
这类证据开始连接组织定位、菌群协同和功能实验。可人体癌变往往跨越十几年甚至几十年。研究者最终需要解决的是时间顺序:菌群改变是在腺瘤之前就出现,还是在肿瘤改变局部环境之后才显著富集?它参与的是癌变启动、进展、免疫逃逸,还是治疗耐药?
这也是为什么纵向队列尤其关键。
胃癌、口腔癌、食管癌,呈现出不同的组合
胃癌中,肿瘤来源的P. intermedia 与疾病进展之间已有研究联系,其中包括 PLIN3 等宿主通路。
口腔鳞状细胞癌的证据更贴近其原生生态位。患者-对照研究发现P. intermedia检出差异,实验研究则观察到其可促进肿瘤细胞增殖、侵袭和炎症因子释放;较新的研究还把肿瘤内P. intermedia与 ISG15、M2 型巨噬细胞极化和免疫抑制微环境连接起来。
食管鳞癌研究中,P. nigrescens 感染与 Ki67、p-STAT3 等增殖信号升高有关。
Prevotella 并不只生活在肠道。口腔、阴道等黏膜部位都可以发现这个菌属,而不同部位提供的营养、氧化还原状态、邻近菌群和免疫环境并不相同。
为什么某些普雷沃氏菌在牙周袋这样的环境里容易扩增?
口腔是普雷沃氏菌属最重要的生态位之一。特别是P. intermedia、P. nigrescens 等产黑色素厌氧菌,与牙周疾病长期联系在一起。
牙龈炎症时,组织出血增加,血红素和铁资源大量进入牙周袋;与此同时,局部氧化还原环境下降,更适合厌氧菌生长。
吸烟为什么也会和口腔 Prevotella 联系起来?
吸烟并不是单纯把某种细菌吸进嘴里。它改变的是局部氧化还原状态、免疫反应、唾液环境和黏膜状态,因此可以重新排列口腔微生物竞争关系。
吸烟者口腔中P. melaninogenica、P. pallens 等物种可发生富集;如果同时存在口腔卫生差、吞咽功能异常等情况,口腔厌氧菌还可能进入下呼吸道。
这里再次说明:生活方式和微生物之间的关系,往往通过改变生态位实现。
P. intermedia的血红素利用和乳铁蛋白相关铁获取能力,这些特征让它在炎症牙周袋中的竞争力明显提高。
牙周炎改变环境 → 环境选择Prevotella → Prevotella 加重局部炎症和组织破坏 → 新的营养和生态位继续释放
编辑
阴道:群落结构决定它能不能扩张
阴道微生态提供了另一个很典型的例子。
健康状态下,乳杆菌通常占据优势,并通过维持较低 pH等方式限制其他微生物扩张。
当乳杆菌减少、乳酸下降、pH 上升,这种稳定结构被打破后,Prevotella bivia等厌氧菌获得新的生态空间。
随后又会出现微生物之间的代谢互利。例如 P. bivia 与 Gardnerella vaginalis可以通过代谢物交换促进彼此生长,帮助致病性生物膜形成。
注:这和肠道里的 普雷沃氏菌和具核梭杆菌协同并不是同一个机制,却在生态学上讲的是同一件事:环境先改变竞争规则,随后微生物之间的合作进一步稳定新的失衡状态。
从黏膜到关节:影响还可以延伸到远端
环境依赖性还有一个更复杂的层面:微生物生活在黏膜,但它引起的免疫变化未必停留在原来的位置。
类风湿关节炎是其中较受关注的例子。
部分研究发现,P. copri与类风湿关节炎人群中的菌群变化存在关联,而 Prevotella相关的 TLR、Th17 和 IL-17 等免疫通路,也被用于解释黏膜微生物变化与远端炎症之间可能存在的连接。
在特定类风湿关节炎模型和宿主背景下,高纤维饮食与 P. copri甚至可能协同加重炎症。
注:营养学进入微生态时代以后,一个越来越清楚的方向,就是从“这种食物平均有什么作用”,走向:这种底物,在这个人的这套菌群里,会被谁利用,最后生成什么?
神经、过敏、IBS 、多发性硬化研究
部分儿童队列中,自闭症谱系障碍与较低 Prevotella丰度出现相关;
一些婴幼儿研究观察到P. copri定植与食物过敏风险存在关系;
多发性硬化动物研究中,Prevotella histicola 显示出增加 Treg、降低 Th17 相关炎症的潜力。
腹泻型肠易激综合征和部分慢性黏膜炎症研究又发现某些Prevotella富集。
这也说明,这个菌属的生物学意义高度依赖宿主免疫状态、组织生态位和具体菌株。
微生态研究早期,人们很自然地希望找到,哪些菌有益,哪些菌有害;少了就补,多了就杀。这很容易理解,也很方便传播。
普雷沃氏菌,也许正使我们放弃“好菌坏菌”的那套思路。
它可以出现在高纤维、短链脂肪酸丰富的肠道生态中;也可以参与 Th17 型慢性炎症。
它可以通过代谢物帮助维护屏障和 Treg 稳态;某些菌株又可以借助 LPS、T9SS、OMVs 和其他机制推动组织损伤。
它可以是人体长期共生生态系统的一部分,也可以在牙周炎、肠道失衡或肿瘤形成的新生态位中获得完全不同的功能位置。
谷禾凭借积累的海量肠道菌群样本,深度提取菌群构成结构中隐含的信息,从不同的健康轴洞察普雷沃氏菌的健康影响。基于健康轴和菌群结构,我们将全面量化普雷沃氏菌的个性化干预策略,让菌群调整更精准。
相关阅读:
肠道重要基石菌属——普雷沃氏菌属 Prevotella
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
主要参考文献
向上滑动阅览
Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75:10–45.
Dammeijer F, et al. The PD-1/PD-L1-checkpoint restrains T cell immunity in tumor-draining lymph nodes. Cancer Cell. 2020;38:685–700.e8.
Lu Z, Tang D. The dual roles of Prevotella in gastrointestinal tumorigenesis: from molecular mechanisms to therapeutic prospects. Frontiers in Oncology. 2026;16:1855577.
Wong CC, Yu J. Gut microbiota in colorectal cancer development and therapy. Nat Rev Clin Oncol. 2023;20:429–52.
Tett A, et al. Prevotella diversity, niches and interactions with the human host. Nat Rev Microbiol. 2021;19:585–99.
Fehlner-Peach H, et al. Distinct polysaccharide utilization profiles of human intestinal Prevotella copri isolates. Cell Host Microbe. 2019;26:680–690.e5.
Gálvez EJC, et al. Distinct Polysaccharide Utilization Determines Interspecies Competition between Intestinal Prevotella spp. Cell Host Microbe. 2020;28:838–852.e6.
Larsen JM. The immune response to Prevotella bacteria in chronic inflammatory disease. Immunology. 2017;151:363–74.
Hao QY, et al. Prevotella copri promotes vascular calcification via lipopolysaccharide through activation of NF-kB signaling pathway. Gut Microbes. 2024;16:2351532.
Tannahill GM, et al. Succinate is an inflammatory signal that induces IL-1b through HIF-1a. Nature. 2013;496:238–42.
Urra H, et al. Endoplasmic reticulum stress and the hallmarks of cancer. Trends Cancer. 2016;2:252–62.
Gur C, et al. Binding of the Fap2 protein of Fusobacterium nucleatum to human inhibitory receptor TIGIT protects tumors from immune cell attack. Immunity. 2015;42:344–55.
Lo CH, et al. Enrichment of Prevotella intermedia in human colorectal cancer and its additive effects with Fusobacterium nucleatum on the Malignant transformation of colorectal adenomas. J Biomed Sci. 2022;29:88.
Cogrossi LL, et al. Microbiome modulation uncouples efficacy and toxicity induced by immune checkpoint blockade in mouse multiple myeloma. Nat Commun. 2025;16:65312.
Furusawa Y, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature. 2013;504:446–50.
谷禾健康
腐烂别样杆菌(Alistipes putredinis)属于拟杆菌门、另枝菌属的重要物种,是肠道中较具代表性的蛋白质发酵型厌氧菌。与部分以复杂碳水化合物发酵为主的结肠厌氧菌相比,其糖类利用能力相对较弱,因此其丰度可能受肠腔内蛋白质和氨基酸供给、可发酵碳水化合物的可利用性,以及其他菌群对糖类底物的优先消耗影响。当高蛋白供给、氨基酸底物丰富且膳食纤维不足时,该菌会获得相对有利的生长条件。
多项小鼠研究及小规模人体队列研究提示,A.putredinis在肠道屏障完整的情况下,可以促进免疫耐受并抑制过度炎症;而在屏障破坏和菌群失衡背景下,其定植量增加,伴随的琥珀酸相关代谢信号促进 Th17 型炎症反应。意味着当我们持续高蛋白,缺乏膳食纤维时,如果菌群失调,肠屏障受损时,该菌会转向机会扩张并促炎。
近年来的队列研究和多组学分析显示,A.putredinis丰度升高对身体活动后的体重反应,能够减轻高脂饮食中的体重增加、对代谢综合征风险、脂肪性肝病及溃疡性结肠炎等也有潜在保护作用;但同时另外的研究也指出该菌的丰度升高与抑郁、功能性便秘、焦虑和慢性疲劳等症状呈现正相关。
这种看似矛盾的结果进一步说明,A. putredinis 不能被简单归类为“有益菌”或“有害菌”,当肠道菌群检测出该菌超标或丰度过高过低时,要受检者的症状,炎症和屏障指标,以及近期饮食干预等状况综合解读。
腐烂别样杆菌(Alistipes putredinis)属于拟杆菌目下理研菌科(Rikenellaceae)的另枝菌属(Alistipes)。
该菌最早于1937年被描述为Bacteroides putredinis(”腐臭拟杆菌”,种名 putredinis 源自拉丁语”腐臭”,与其腐败代谢特征相关)。
2003年基于16S rRNA基因序列与生化特征,将其重新分类为新属Alistipes的模式种。
1. 细胞形态与培养特征
✔形态:革兰氏阴性短杆菌,两端钝圆,通常单个或成对排列;无芽孢、无鞭毛且不运动。大小约0.3–0.5 × 0.9–3.0 μm。
✔菌落特征:在哥伦比亚血琼脂上厌氧培养 96 小时后,形成灰色、湿润、细小且不溶血的菌落,大小约为针尖至 0.5 mm,表面光滑,颜色由半透明至灰白色。
✔色素:不产色素,可与产棕褐色色素的A.finegoldii、A.onderdonkii和A.shahii区分。
✔生长特性:
严格厌氧,生长缓慢,在液体培养基中生长较弱,部分条件下可产气,耐氧性较差,暴露于氧气后活菌数随时间延长而下降,120 分钟后仅少量存活;胆汁耐受,但不耐受 20% 胆汁,这一点不同于该属多数耐胆汁种。
2. 基因组特征
对模式菌株 CCUG 45780ᵀ 的全基因组测序显示 :
•染色体呈环状,全长 2,599,205 bp(约2.6Mb),GC 含量为 53.63%。
•共注释 2479 个基因,包括 2423 个蛋白质编码序列、6 个 rRNA、49 个 tRNA 和 1 个 ncRNA。
•携带13 个 Set A 核心毒力基因和28 个 Set B 毒力相关基因,主要参与黏附、抗吞噬、镁离子摄取、表面结构形成及环境适应。
•检出11 个耐药基因,主要与大环内酯类、四环素类和氨基糖苷类耐药有关,以外排泵为主要机制。
•功能注释表明,其基因主要富集于碳水化合物、氨基酸、能量以及辅因子和维生素代谢通路,显示出较强的代谢多样性。
3. 生化与代谢能力
✔关键生化表型:
编辑
✔核心代谢策略:蛋白质/氨基酸发酵
A. putredinis的显著生态学特点是采用”弱糖酵解,蛋白发酵“策略——主要发酵蛋白质和氨基酸而非碳水化合物,以此避开肠道中与糖发酵菌的资源竞争。
事实上,Alistipes 是肠道共生菌中腐败代谢通路最丰富的菌属之一,可参与组氨酸降解/THF生成、吲哚生成和苯酚生成,产生氨、H₂S、甲酚、吲哚、苯酚等腐败产物(其中部分与结直肠癌风险相关)。
✔主要代谢产物:
琥珀酸(succinate)——最主要的体外终产物,是丙酸生成的中间体,具有促炎潜能;
丙酸(经琥珀酸途径)、乙酸——供能、抗炎、调节血压。
吲哚-3-丙酸(IPA)——强抗氧化物,保护血管内皮与神经系统,通过靶向STAT3对抗饮食诱导的肥胖来增强瘦素敏感性;
吲哚乙酸(IAA)等——介导色氨酸代谢与免疫调控;
由于吲哚阳性,其丰度升高时会与肠嗜铬细胞竞争色氨酸,间接降低 5-羟色胺(血清素)合成(与抑郁、功能性便秘相关)。
靶向代谢组学显示培养上清中 9 种能量代谢物显著升高(磷酸烯醇式丙酮酸、丙酮酸、D-葡萄糖-6-磷酸等),其中仅琥珀酸具明确促炎作用 。
4. 生长环境与人群分布
✔定植部位:
主要定植于回肠末端和结肠,是耐胆汁环境下仍可定植的核心厌氧菌之一;
也可从粪便、阑尾组织、腹部及直肠脓肿、血流、尿液、腹水中分离(条件致病时);
动物来源:羊腐蹄病、农场土壤、家禽肠道(鸡盲肠中为丙酸产生菌)。
✔人群分布规律:
健康人群:普遍存在,是肠道共生菌之一;宏基因组调查显示其为 Alistipes 属中丰度最高的物种。
年龄:老年人(≥65 岁)中 Alistipes 属显著富集;值得注意的是,在长寿女性(≥90 岁)中A.putredinis、A.finegoldii、A.shahii 比年轻老年组(60–90 岁)富集约 3.2 倍,被视为健康衰老的潜在共生标志物 。该属还可垂直传播 3–4 代。
✔丰度降低相关的疾病状态:
炎症性肠病(IBD)、肝硬化、慢性疲劳综合征、焦虑、肥胖、儿童食物过敏等。
5. 耐药性与药敏谱
✔敏感:克林霉素、头孢西丁、氯霉素、红霉素、甲硝唑 ;
✔中度耐药:四环素、强力霉素;
✔临床菌株:对 β-内酰胺/β-内酰胺酶抑制剂和甲硝唑 MIC 低,对青霉素、头孢曲松、米诺环素 MIC 高 ;
基因组预测的 11 个耐药基因主要针对大环内酯类、四环素类、氨基糖苷类,以外排泵机制为主 。
临床意义:厌氧菌感染治疗中甲硝唑、β-内酰胺类仍是可靠选择;对四环素类的固有/获得性中度耐药提示该类药不适用于相关感染。
6. 与其他菌群的互作
•腐烂别样杆菌(Alistipes putredinis)与 Bacteroides fragilis、Faecalibacterium prausnitzii、Akkermansia muciniphila等短链脂肪酸产生菌协同互补;
•与链球菌属存在潜在拮抗关系(房颤患者链球菌暴增伴随 Alistipes 骤降);
•DSS 结肠炎模型中,灌胃该菌使拟杆菌门增多、放线菌门和乳杆菌属减少,并增加 肠球菌、肠杆菌、埃希菌 等机会致病菌丰度——即破坏菌群稳态;
•高脂饮食下,属内近缘种(A. finegoldii)的外膜囊泡(OMVs)含磺酰脂类(sulfonolipids)加重炎症,提示饮食-菌群互作决定其表型方向 。
腐烂别样杆菌(Alistipes putredinis)在人体健康与疾病中的作用并非单一。在阅读了众多文献后,较为一致的观点是:在代谢健康与部分正常黏膜微环境中,它相对常见;但在炎症或肿瘤相关微环境中,特定菌株或在属水平的升高可能转而表现出促炎、促病效应。在人类与动物研究中,这种“双相性”已分别与肝病、炎症性肠病、结直肠癌、抑郁以及肺癌免疫治疗反应相关。
A. putredinis 对宿主的作用具有双重性
✔抗炎通路:从溃疡性结肠炎(UC)患者优质 FMT 供体分离的 A. putredinis 菌株可经 TLR2 诱导抗炎性 IL-10 产生,抑制肠道炎症 。
✔促炎通路:Alistipes putredinis分泌的琥珀酸可作为“代谢激素”作用于宿主琥珀酸受体 SUCNR1(GPR91),稳定 HIF-1α,进而上调 IL-1β、增强 NLRP3 炎症小体活化(提高 ASC、caspase-1 及 IL-1β/IL-18 表达),促进树突细胞抗原提呈并驱动 Th17 分化,同时抑制 Treg 功能。
其基因组携带与黏附和抗吞噬相关的毒力基因(如 katA、htpB、clpP、cpsA、algI 等)。
✔双重性模型:在健康小鼠中口服该菌(10⁹ CFU/天)不引起任何病理改变(体重、血象、脏器病理、炎症因子均正常);只有当 DSS 破坏肠道屏障后(第二次打击),该菌才借机增强定植并放大炎症。
小编的话
A. putredinis的生物学效应具有明显的菌株特异性和宿主环境依赖性:
在屏障完整的肠道中,部分菌株可能通过 TLR2–IL-10 轴促进免疫耐受;而在 实验中通过DSS所致屏障破坏和菌群失衡背景下,其定植增强及琥珀酸相关代谢信号可能激活 SUCNR1–HIF-1α 和 NLRP3 炎症通路,从而放大 Th17 型肠道炎症。
意味着当我们屏障受损或菌群失调时,该菌会机会扩张促炎,因此,我们偏向该菌可能是条件共生菌,有益或有害依赖宿主环境。
1. 调节活动控制体重的效果
编辑
影响因子:11.607
来自哈佛大学的一项研究发现肠道中的Alistipes putredinis可以调节体力活动/身体活动(PA)和体重之间的关联。
✔高A. putredinis丰度人群体重增幅更小
研究人员对一项卫生专业人员队列进行了长期随访,并从中筛选一个子队列开展为期一年的深入研究:采集粪便与血液样本,检测肠道微生物及血液指标,同时记录详细的身体活动数据。分析显示,体重在长期趋势上会随年龄增长而增加;但在具有较高 A. putredinis 丰度的人群中,身体活动带来的体重增幅平均减少 2.26 kg,而在 A. putredinis 丰度较低的人群中,体重增幅平均仅减少 1.01 kg。
编辑
doi: 10.1186/s40168-023-01542-w.
✔A. putredinis调节体重反应,可能有助于代谢健康
通过功能分析推测:当A. putredinis存在时,它对 PA(身体活动)—体重反应的调节可能与多种微生物代谢途径有关,例如糖异生、脂肪酸 β-氧化、棕榈油酸生物合成和叶酸转化等。该结果提示:肠道微生物特征可能是影响体重变化及其对PA 代谢反应的重要组成部分。
研究者提出两种主要假设:其一,携带A.putredinis 可能通过改变肠道代谢,提高 PA 对抑制体重增加的有益作用;其二,较低 PA 再叠加其他外源性因素,可能增加获得 A. putredinis并进一步导致体重增加的机会。
一旦得到确认,这一发现可能带来两方面意义:第一,它支持肠道微生物调节有潜力增强 PA 在体重管理中的效果;针对个体微生物特征定制的策略,或可作为减轻肥胖相关健康风险的更可持续方案。第二,它也开启新的研究方向:寻找可提升A.putredinis 丰度、从而带来PA 相关代谢获益的方法。
尽管未观察到 PA 与 A. putredinis的直接关联,但已有证据显示,在糖尿病前期人群中,PA 干预可增加该菌;同时,十字花科蔬菜摄入也被报道与人体该类菌丰度增加有关。
2. 更低的代谢综合征风险
编辑
影响因子:6.633
在一项对1342 名受试者的横断面研究中发现,Alistipes putredinis更高丰度与代谢综合征更低风险、潜在更好的血管健康信号相关。
✔Alistipes putredinis与代谢综合征呈负相关
在对1342名中国受试者开展的大规模研究中,研究者借助宏基因组测序系统分析了健康生活方式、肠道微生物群与代谢综合征(MetS)的关系。
结果显示,Alistipes putredinis、Odoribacter splanchnicus和 Roseburia hominis 的丰度与健康生活方式呈显著正相关;同时与MetS 风险呈负相关。
Alistipes putredinis丰度更高时,微生物进行同型乳酸发酵能力的增强,血浆中的肉桂基甘氨酸和甜菜碱水平升高,这些被发现是与代谢综合征和血管健康相关的潜在微生物效应因子。
✔可能通过微生物代谢产物影响血管健康
该研究通过多组学进一步鉴定出与健康生活方式及 血管指标相关的关键微生物代谢通路和血浆代谢物。其中,Cinnamoylglycine(N-肉桂酰甘氨酸)和甜菜碱与由肠道微生物增强的同型乳酸发酵相关;同时,它们与更好的血管健康结局(如动脉僵硬、早期动脉病变、PAD)表现相关;并且这些代谢物与相关厌氧发酵产能菌(包括A.putredinis)丰度有关。
与HLS相关的微生物功能与代谢综合征存在密切关联
编辑
doi: 10.1128/msystems.01433-25
3. 脂肪性肝病中丰度下降
编辑
影响因子:4.546
✔代谢相关脂肪性肝病患者A. putredinis减少,补充后可改善症状
研究发现,在代谢相关脂肪性肝病中,A.putredinis 丰度持续下降,且与肝纤维化进展呈负相关,纤维化越重丰度越低。
在高脂饮食诱导的代谢功能障碍相关脂肪性肝病(MASLD)小鼠模型中,补充Alistipes putredinis 菌株 Ap77 后,动物体重增加受抑、肝脏甘油三酯水平下降,脂肪沉积减少,并伴随肝组织学及肝功能相关指标的改善。
✔A.putredinis可能有助于抑制炎症信号通路
补充A. putredinis 菌株 Ap77后,观察到:炎症相关细胞因子(如 IL-1β、IL-6、TNF-α)显著下降,并且健康相关细菌种类增加,提示肠道微生物群结构被重塑。研究人员认为,A. putredinis Ap77 可能通过改善肠道生态组成并抑制炎症信号通路来缓解代谢功能障碍相关脂肪性肝。
编辑
doi: 10.3390/nu17122013.
4. 溃疡性结肠炎中减少
编辑
影响因子:4.261
在溃疡性结肠炎患者中,A. putredinis的比例有所下降。而在治疗后呈现定植/丰度恢复的趋势,并通过诱导 IL-10(与 TLR2 信号通路相关)发挥抗炎作用,进而缓解结肠炎表型。
✔A. putredinis抑制炎症,促进 IL-10 产生(抗炎通路相关)
体外实验显示,A. putredinis菌株具有较强的诱导抗炎因子 IL-10活性,并且 IL-10 产生与 TLR2 信号通路有关(用 TLR2/TLR4 抑制/阻断后 IL-10 诱导能力下降)。
体内结肠炎模型中,口服给予 AP 后,结肠炎指标改善,表现为体重损失减轻、结肠长度等炎症相关表现更接近正常,支持其抗炎效应。
✔但也存在矛盾的证据:A. putredinis CCUG 45780ᵀ加重结肠炎
编辑
影响因子:2.989
A. putredinis CCUG 45780ᵀ 灌胃显著加重 DSS 结肠炎——体重下降、DAI 升高、结肠缩短、脾肿大、黏膜损伤与黏蛋白减少,TNF-α、IL-1β、IL-6、NLRP3 表达上调;机制为琥珀酸–SUCNR1 信号轴(结肠内容物琥珀酸升高、SUCNR1 表达上调)联合菌群失调 。
可能的合理解释:①种间功能差异巨大;② 菌株特异性;③ 丰度与疾病阶段依赖性(低丰度早期能促进 Treg,过度增殖时经 IL-6/STAT3 促炎);④ 饮食背景(高脂转向促炎)。
5. 可能促进乳腺癌转移
编辑
慢性应激可改变肠道菌群,促使Alistipes putredinis丰度升高,并伴随吲哚-3-乙酸(IAA)产生增加。
在患者/人群层面,研究发现乳腺癌患者中A.putredinis及 IAA 水平均可升高,且在合并严重抑郁人群中更为明显。
✔A.putredinis增多会提高IAA水平进而增加氧化应激
研究认为,应激诱导的A. putredinis增多会提高 IAA 水平,进而通过 AhR(芳香烃受体) 通路介导的氧化应激,促进癌症发生肺转移。
干预效应:使用黄芩苷(baicalin)可抑制该过程,包括降低A. putredinis丰度与 IAA 生成,从而缓解 AhR 相关氧化应激与转移表型,并增强肺部 CD8+ T细胞活性,提示其可能同时改善免疫效应。
✔可能成为癌症免疫治疗应答的预测标志
在非小细胞肺癌(NSCLC)患者中发现对 nivolumab(抗 PD-1)应答良好者 A. putredinis丰度显著升高。
6. 其他疾病关联
①食物过敏:过敏儿童中A.putredinis和A.finegoldii显著减少,SCFA 依赖的屏障完整性与免疫调节是其保护机制 。
②功能性便秘:患者肠道Alistipes显著高于健康对照,假设其过度将色氨酸转化为吲哚类,竞争性抑制肠嗜铬细胞 5-HT 合成,延长结肠传输时间。
③抑郁:中国重度抑郁症患者粪便中Alistipes 增多,机制假说:吲哚阳性菌竞争色氨酸 → 5-HT 合成减少 ;但也有研究报道抑郁中本菌减少,提示结论不一致。
④慢性疲劳综合征(ME/CFS):挪威患者中 Alistipes增加近 4 倍 。
⑤焦虑与应激:BALB/c 小鼠应激模型中Alistipes显著增加并伴行为改变 。
⑥自闭症谱系:意大利 ASD 儿童中Alistipes减少(保护性),但 PDD-NOS 亚型中最高(可能与丙酸过量产生及其神经生物学效应相关)。
7. 机会性感染风险
A. putredinis可在特定条件下从胃肠道异位至血流,尤其在老年合并消化道肿瘤或梗阻的患者中。日本一项回顾性分析报告13例 Alistipes 菌血症,其中3例为A. putredinis感染,2例合并实体瘤的老年患者死于脓毒性休克。
总体而言,腐烂别样杆菌(Alistipes putredinis)应被视为一种具有情境依赖性的肠道共生菌,而非固定意义上的益生菌或病原菌。其核心特征在于严格厌氧定植、偏好蛋白质和氨基酸发酵,以及可产生琥珀酸、短链脂肪酸和吲哚类代谢物等具有宿主信号作用的分子。
在健康肠道或代谢相对稳定的背景下,较高丰度或某些功能性菌株与较低的代谢综合征风险、较好的身体活动—体重反应、脂肪性肝病改善及抗炎性 IL-10 反应相关;但这些关联尚不能直接等同于因果效应。
相反,在高脂饮食、肠屏障受损、菌群失衡、慢性应激或肿瘤相关微环境中,特定菌株及其琥珀酸或 IAA 等代谢产物可能通过 SUCNR1、AhR 等信号轴促进炎症、氧化应激或不良结局。并且在临床上,A. putredinis还偶可发生异位并参与感染。
因此,临床或完成肠道菌群检测后,不能仅凭单一菌种判断其好坏,需结合整体肠道微生态、功能基因、代谢物谱及宿主生活方式综合评估。例如在肠道健康的人体中 Alistipes putredinis可能有益,但若纤维摄入不足、蛋白摄入过量,或是肠道屏障受损,它也可能转为有害。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Zhang Y, Xie J, Yan X, Zhao W, Xu H, Sun L, Wang H, Zhao L. The role of the Alistipes genus in intestinal inflammation, cancer, and aging: a narrative review. Front Microbiol. 2026 May 21;17:1822008.
Wang K, Mehta RS, Ma W, Nguyen LH, Wang DD, Ghazi AR, Yan Y, Al-Shaar L, Wang Y, Hang D, Fu BC, Ogino S, Rimm EB, Hu FB, Carmody RN, Garrett WS, Sun Q, Chan AT, Huttenhower C, Song M. The gut microbiome modifies the associations of short- and long-term physical activity with body weight changes. Microbiome. 2023 May 30;11(1):121.
Zhang Z, Ye B, He J, Xiang L, Li S, Zhao J, Chen W, Zhang Q, Zhao W, Yang J, Li Y, Ju J, Liu Y, Xia M. Microbial metabolites associated with healthy lifestyles in relation to metabolic syndrome and vascular health: a cross-sectional study. mSystems. 2026 Feb 17;11(2):e0143325.
Zhang S, Wang R, Zhao R, Lu Y, Xu M, Lin X, Lan R, Zhang S, Tang H, Fan Q, Yang J, Liu L, Xu J. Alistipes putredinis Ameliorates Metabolic Dysfunction-Associated Steatotic Liver Disease in Rats via Gut Microbiota Remodeling and Inflammatory Suppression. Nutrients. 2025 Jun 16;17(12):2013.
https://doi.org/10.1002/9781118960608.gbm00251Digital Object Identifier (DOI)
Ishikawa D, Zhang X, Nomura K, Shibuya T, Hojo M, Yamashita M, Koizumi S, Yamazaki F, Iwamoto S, Saito M, Kunigo K, Nakano R, Honma N, Urakawa I, Nagahara A. Anti-inflammatory Effects of Bacteroidota Strains Derived From Outstanding Donors of Fecal Microbiota Transplantation for the Treatment of Ulcerative Colitis. Inflamm Bowel Dis. 2024 Nov 4;30(11):2136-2145.
Niu M, He QY, Chen YX, Liu SM, Pan YQ, Zhu XR, Miao YL, Du Y. Alistipes putredinis CCUG 45780T exacerbates DSS-induced colitis in mice via modulation of gut microbiota and succinate metabolism. BMC Microbiol. 2025 Nov 27;25(1):786.
谷禾健康
什么是慢性疲劳?
疲劳是身体向我们发出的信号,表明我们需要休息和恢复体力。这种疲劳通常发生在剧烈运动后或睡眠不足时。通常情况下,我们可以通过增加睡眠时间、让身体在运动后得到恢复、保持健康的饮食习惯以及减少压力来缓解疲劳。
但是,如果你即使睡了一晚上,并且戒掉了糖分摄入后仍然感到疲惫不堪,那么疲劳就可能变成了慢性问题。
患有慢性疲劳的人不仅身体疲惫无力,还会缺乏完成日常任务的动力,无法集中注意力,甚至可能会感到轻微的抑郁情绪。
贫血
贫血的主要症状是疲劳。贫血可能由多种原因引起,但常见的三种营养因素包括铁、维生素B12和叶酸(维生素B9)的缺乏。
疲劳最常见的原因之一就是缺铁。实际上,缺铁是全球范围内最常见的营养缺乏现象。人体中的大部分铁都存在于血红蛋白中,血红蛋白有助于将氧气输送到细胞,而细胞则利用氧气来产生能量。
铁含量低可能由以下原因引起:
血液检测:由于血液中的铁含量每天都会有所波动,并且在摄入富含铁的食物后会有所增加,因此建议进行铁蛋白检测。如果长期的调理铁,还要做肠道菌群的评估。
维生素B12缺乏
像铁一样,维生素B12也是制造红细胞所必需的成分,因此它是产生能量的关键营养素。此外,维生素B12在制造 DNA方面也起着重要作用,同时它对于大脑和神经系统的正常运作也是不可或缺的。
维生素B12缺乏可能需要数年时间才会显现出来,因为肝脏中有储存大量的维生素B12的能力。
容易出现维生素 B12 缺乏的人群包括:
叶酸(维生素 B9)缺乏
叶酸是另一种对生成红细胞至关重要的维生素。它对于过程也是必需的。
叶酸缺乏通常发生在那些摄入水果和蔬菜不足的人身上。酗酒者以及哺乳期母亲也更容易出现叶酸缺乏的问题。
甲状腺功能低下(甲状腺功能减退)
患有甲状腺功能减退症的人会感到疲劳、难以减肥、出现脱发现象,并且对寒冷非常敏感。
大约 90%的甲状腺功能减退病例是由一种名为桥本氏甲状腺炎的自体疾病引起的。
编辑
如果有甲状腺功能减退的症状,医生通常会先检测患者的促甲状腺激素水平。促甲状腺激素是一种促使甲状腺分泌甲状腺激素的激素。还可能检测游离 T3 和游离 T4的水平。
如果需要的话,还会检查甲状腺抗体水平:甲状腺过氧化物酶抗体(TPOAbs)和甲状腺球蛋白抗体(TgAbs)。超过90%的桥本病患者检测出 TPOAbs 阳性,而大约大于70%的患者检测出 TgAbs 阳性。
维生素D缺乏
除了缺铁之外,最常见的营养缺乏之一是维生素 D 缺乏。全球有近十亿人受到这种状况的影响。由于阳光照射与皮肤癌和皮肤损伤之间的关联,人们大大减少了在阳光下停留的时间。不过,因为阳光照射能够满足人体 50-90%的维生素 D 需求,所以还是有必要进行适量的阳光照射。
只有少数食物天然含有维生素 D,而强化食品则不太可能满足全额的日常需求。
许多研究也表明,维生素 D 缺乏与疲劳症状有关。补充维生素 D 能够改善健康人群以及各种疾病患者的疲劳症状。
肠道微生物群
肠道微生物群在疲劳和慢性疲劳综合征中扮演着重要角色,肠道微生物群可以帮助产生重要的神经递质,维持肠道屏障完整性,防止炎症物质进入血液。在慢性疲劳综合征患者中,研究发现产丁酸盐菌明显减少,这可能与症状严重程度相关。
对慢性疲劳综合征患者进行的干预主要集中在使用双歧杆菌和乳酸菌菌株上,这些菌株在减少炎症和氧化应激方面始终表现出良好的效果,并且伴随着疲劳感的降低。例如,在8周内使用干酪乳杆菌菌株Shirota的益生菌治疗可显著降低慢性疲劳综合征(ME/CFS)患者的炎症标志物。
编辑
doi.org/10.3390/nu16111545
肝功能严重受损
肝脏负责帮助消化、解毒药物和化学物质、合成蛋白质,以及储存铁、维生素 A 和 B12 等营养物质。肝脏在维持人体能量水平方面起着至关重要的作用,而疲劳则是慢性肝病患者常见的症状之一。
睾酮水平低
睾酮是一种对维持高能量水平至关重要的激素,不仅对男性如此,对女性也是如此。睾酮水平较低的人最常见的抱怨就是缺乏能量和动力。
不幸的是,男性和女性的睾酮水平在 20 多岁达到高峰后,每年会下降 1-2%。
减轻压力
压力和疲劳之间存在着密切的关联,它们经常同时出现,并且会相互影响。生活中的压力不仅可能导致创伤后应激障碍,还可能引发慢性疲劳综合症。
多项研究指出,认知行为疗法在压力管理方面能够有效减轻慢性疲劳综合症、纤维肌痛症和多发性硬化症引起的疲劳感。同样,将认知行为疗法与正念冥想相结合使用,也有助于缓解纤维肌痛症和癌症患者出现的疲劳症状。
编辑
研究表明,通过呼吸练习和肌肉放松练习来进行放松疗法,对于缓解慢性疲劳综合症、多发性硬化症、癌症、心力衰竭以及干细胞移植等疾病的疲劳症状有一定的帮助。不过,在那些同时比较了这两种疗法的研究中,认知行为疗法表现得更为有效。
提高睡眠质量
睡眠对保持健康至关重要。如果无法获得足够且高质量的睡眠,就会引发疲劳以及其他多种健康问题。从事夜班工作或夜间工作的人(如医疗专业人员)更容易出现睡眠障碍和疲劳现象。
在患有慢性疲劳综合症、癌症、多发性硬化症、炎症性肠病以及过敏性鼻炎等疾病的人群中,睡眠障碍非常常见。而这些症状往往会进一步加重患者的疲劳感。
编辑
一些临床研究表明,针对睡眠障碍的治疗可能有助于缓解由某些疾病引起的疲劳症状,例如癌症和多发性硬化症。此外,认知行为疗法也被认为能够改善慢性疲劳综合征患者的睡眠质量。
吃出好睡眠:基于肠道菌群的营养干预落地方案
锻炼
久坐不动的生活方式是导致持续疲劳的常见原因。多项研究指出,增加锻炼量有助于减轻健康人的疲劳感。然而,在一项针对中老年人进行的调查中,人们最常给出的不锻炼的理由却是“太累了”。
患有慢性疲劳综合症的人特别难以满足身体活动的要求。根据一项荟萃分析,对于这类患者来说,定期进行体育锻炼有助于减轻疲劳感,其效果甚至优于健康人群。
然而,过度锻炼会导致疲劳以及多种健康问题。专家建议进行适度的运动,比如快走、游泳或骑自行车。
无法坚持运动?解密肠道菌群影响运动积极性
保持水分状态
即使是很轻微脱水的情况,也会使健康人的精神疲劳加剧,同时降低运动员的体力和认知功能。
根据多项临床试验的结果,重新补充水分有助于缓解疲劳症状;而保持充足的水分摄入则可以预防疲劳的发生。
按摩
一些临床试验表明,按摩可以有效减轻运动后局部的肌肉疲劳和酸痛感。不过,冷水浸泡似乎对缓解整体疲劳更为有效。
一项小型临床试验发现,将按摩椅与脑按摩相结合的方法能够有效减轻精神疲劳并改善认知功能。
一项荟萃分析表明,按摩疗法,尤其是肌筋膜释放疗法,能够减轻纤维肌痛患者的疲劳感。在一项针对患有这种疾病的女性的临床试验中,按摩疗法与体育锻炼结合使用时,其效果更为显著。
虽然另一项荟萃分析表明,按摩疗法在减轻乳腺癌患者的疲劳感方面是有效的,但由于大多数研究的质量较低且样本量较小,因此缺乏足够的证据来支持按摩疗法用于缓解与癌症相关的疲劳症状。
注:还有一些有限的证据表明,按摩可能有助于缓解慢性疲劳综合症、类风湿性关节炎、多发性硬化症、腰痛、血液透析、脊髓损伤、骨髓移植以及帕金森病引起的疲劳。
寒冷暴露
多项研究指出,在运动前进行冷水浸泡有助于提高运动表现。在运动过程中,仅通过外部降温措施(例如穿着降温衣物)就能有效减少无氧运动带来的疲劳感;而同时采用外部和内部降温措施(例如饮用冷饮料)则能显著提升有氧运动的表现。
同样,多项研究表明,在运动后接触寒冷环境可以缩短 48 至 72 小时内的疲劳感。全身浸入冷水中似乎比接受冷冻疗法更为有效。
阳光照射
许多研究指出,维生素 D 缺乏与疲劳和肌肉无力有关,不过并非所有有这种缺乏症状的人都会出现这些症状。
适量的阳光照射是补充维生素 D 的最佳方式,因为人体所需维生素 D 的 50-90%可以通过阳光摄取获得。此外,你还可以通过食用富含维生素 D 的食物来补充这种维生素,比如富含脂肪的鱼类、肝脏、蛋黄以及乳制品。
维生素D怎么补更有效?结合肠道的吸收、利用、搭配的科学指南
针灸
针灸主要用于治疗慢性疲劳综合症、癌症(尤其是乳腺癌)以及纤维肌痛症引起的疲劳症状。多项荟萃分析表明,针灸可能具有一定的疗效,但同时也指出大多数研究的质量较低。
编辑
有限的证据表明,针灸可能有助于缓解由失眠、帕金森病、多发性硬化症、骨关节炎以及终末期肾病等疾病引起的疲劳症状。
芳香疗法(薰衣草香味)
在一些临床试验中,使用薰衣草精油进行芳香疗法可以减轻血液透析带来的疲劳和焦虑感。不过,并非所有临床试验都证实了这一效果。此外,薰衣草的香气还能缓解那些在需要应对焦虑任务的健康人群的不适感。
脊椎按摩疗法
在 3 项小型试验中,发现脊椎矫正疗法能够减少纤维肌痛和腰痛引起的疲劳感。
充足的卡路里摄入
卡路里是衡量食物所提供的能量的数量,而身体正是利用这些能量来维持各项功能的运转。多项研究表明,严重的卡路里限制不仅会导致体重下降,还会引发精神和身体的疲劳。重要的是,极低的食物摄入量会增加营养缺乏的风险。
平均而言,成年人每天需要 大约2000 卡路里的能量,不过这一数值会因年龄、性别或体力活动情况而有所不同。据估计,15 至 18 岁的男性每天大约需要 3000 卡路里的能量。如果摄入的卡路里少于 1200 卡路里,可能会导致新陈代谢速度减缓,进而引发疲劳。
有趣的是,一项关于重量举运动员的研究发现,当他们的蛋白质含量较高时,低热量饮食能够减少疲劳、压力以及不满感。
咖啡
对 21 项荟萃分析进行的全面临床研究结果表明,咖啡因能够改善多种运动任务的表现,其部分原因在于咖啡因具有抗疲劳的作用。
当咖啡因能够延缓疲劳时,身体的肌肉就能更有力地收缩,从而让人们能够进行更长时间的锻炼。像跑步、慢跑、有氧健身、游泳和骑自行车等有氧运动,从增加训练量中获益最大。
咖啡因还可以提高警觉性,同时减少精神疲劳,尤其是对那些睡眠不足的人来说更为有效。多项研究指出,饮用含咖啡因的饮料后,人们在进行需要高度集中注意力的任务时,疲劳感会减轻。不过,经常摄入咖啡因的人似乎会逐渐产生对咖啡因作用的耐受性。
咖啡、肠道与健康:深入了解咖啡对肠道菌群的调节作用
减少精制碳水化合物的摄入
摄入碳水化合物后,血液中的葡萄糖水平会迅速上升,随后由于胰岛素的释放,葡萄糖水平会急剧下降。当食用含糖饮料、烘焙食品、糖果、白面包和米饭等食物时,这种效应尤为明显且迅速。多项研究指出,频繁摄入这些食品会导致精神和身体上的疲劳。
充足的铁摄入
多项研究指出,铁缺乏(未伴有贫血)会导致疲劳加剧,以及整体健康状况下降。
富含铁的食物包括肉类、禽肉、内脏肉、鱼类、贝类、豆类、种子、绿叶蔬菜,以及强化食品。
充足的维生素 B12/钴胺素摄入
维生素 B12常见来源包括动物制品,如红肉、鱼类、禽肉、酸奶和牛奶。
摄入足够的维生素 B9/叶酸
“叶酸”这个名称来源于拉丁语“folium”,意为“叶子”。因为叶酸主要存在于菠菜、西兰花、卷心菜和羽衣甘蓝等绿叶蔬菜中。其他富含叶酸的食物还包括柑橘类果汁、豆类以及肝脏。
黑加仑
摄入黑加仑果汁能够减轻健康志愿者在身体和精神上的疲劳感。在一项小型试验中,黑加仑中的花青素也能有效缓解打字工作导致的肩部疲劳和僵硬现象。
编辑
在骑行者中,黑加仑果粉能够减少运动过程中的乳酸积累,并改善休息时的心血管功能。而在登山者中,黑加仑提取物则能够延长攀爬时间和总攀爬时长。
解决食物过敏问题
身心疲劳是人们对食物成分如麸质、乳糖、FODMAPs以及凝集素产生敏感的常见症状。
如果怀疑自己的低能量水平是由于对某些食物的不耐受引起的,建议咨询过敏专家或营养师,进行食物敏感性检测。一般采用排除法饮食疗法,以帮助确定不耐受的原因。
黑巧克力
富含黄酮类的可可和黑巧克力能够被证明能够减轻那些需要持续进行脑力劳动的人以及患有慢性疲劳综合症和多发性硬化症患者的身体和精神疲劳。
肌酸
肌酸是一种在体内自然产生并储存在肌肉中的物质。在体力活动过程中,肌酸会被释放出来,为身体提供所需的能量以维持活动。
多项试验表明,补充肌酸可以有效提高运动表现,并使肌肉疲劳程度减少 14.5%。
肌酸还可以改善认知功能,减少精神疲劳。在那些需要完成需要持续集中注意力的任务或遭受睡眠不足困扰的人群中,肌酸发挥了这样的作用。此外,对于素食者来说,由于他们的饮食中缺乏这种化合物的主要来源,肌酸也有类似的益处。在一项针对老年人的研究中,补充肌酸有助于逆转认知衰退。
辅酶 Q10
在两项针对健康人的临床试验中,口服辅酶 Q10 能够减轻疲劳,并提高体育锻炼时的表现。
有研究指出,定期补充辅酶 Q10 可以有效缓解患有纤维肌痛、多发性硬化、肌肉萎缩以及双相情感障碍等疾病患者的疲劳症状及其他相关症状。
一种口服补充剂,含有辅酶 Q10 和 NADH 成分,能够减轻疲劳,提高慢性疲劳综合症患者的运动表现。
益生菌益生元
对慢性疲劳综合征患者进行的干预主要集中在使用双歧杆菌和乳酸菌菌株上,这些菌株在减少炎症和氧化应激方面始终表现出良好的效果,并且伴随着疲劳感的降低。例如,在8周内使用干酪乳杆菌菌株Shirota的益生菌治疗可显著降低慢性疲劳综合征(ME/CFS)患者的炎症标志物。
使用多菌株益生菌制剂,这些制剂可以对抗抗生素耐药性病原体,增强粘膜屏障并调节免疫反应,包括制剂鼠李糖乳杆菌联合干酪乳杆菌(Ramnoselle) 和干酪乳杆菌联合乳酸双歧杆菌(Cytogenex) 在 8 周后有效改善疲劳(Chadler 评分),这归因于炎症减少,与基线相比,CRP 水平降低了近 30%,免疫力增强,其特征是 IgM 显着增加(是基线值的三倍)和 CD4/CD8 比率降低。
用嗜热链球菌 BT01、短链球菌 BB02、动物芽孢杆菌乳酸亚种 BL03、动物芽孢杆菌亚种 BI04、嗜酸乳杆菌 BA05、植物乳杆菌 BP06、副干酪乳杆菌 BP07 和瑞士乳杆菌 BD08 的八种活菌株和冻干菌株组成的益生菌联盟进行处理 (VSL#3®),与安慰剂相比,4 周后长期COVID患者的Chalder疲劳量表 (CFS)疲劳评分显著降低,安慰剂在干预后维持 4 周。
如果你要补充益生菌 ——益生菌补充、个体化、定植指南
L-肉碱
对于患有慢性疲劳综合症的人来说,连续两周补充 L-肉碱可以改善症状,而且耐受性良好。其衍生的化合物乙酰-L-肉碱和丙酰-L-肉碱也分别对缓解精神和整体疲劳有显著效果。
在老年受试者中,L-肉碱和乙酰-L-肉碱都能有效减轻身体和精神的疲劳感(约减少 40%),增加肌肉质量,并改善认知功能。
一些试验表明,L-肉碱能够有效缓解由纤维肌痛、甲状腺功能减退、肝性脑病、透析相关贫血以及治疗肾癌和丙型肝炎的药物引起的疲劳症状。
虽然 L-肉碱在缓解多发性硬化和癌症患者的疲劳症状方面已被广泛研究,但研究结果并不一致。两项荟萃分析表明,L-肉碱在这两种情况下几乎没有效果或根本无效。
牛磺酸
牛磺酸是一种存在于几乎所有身体组织中的氨基酸,对肌肉的正常功能至关重要。补充牛磺酸可以帮助恢复运动后肌肉中降低的牛磺酸水平。
在患有心力衰竭的患者以及参加短距离自行车运动的运动员中,补充牛磺酸能够减少疲劳并提升身体表现。然而,在另一项针对铁人三项运动员的研究中,牛磺酸并未显示出任何效果。
多项研究指出,将牛磺酸与咖啡因结合使用能够减轻长时间驾驶带来的疲劳感。
人参
在多项针对健康志愿者和慢性疲劳综合征患者的研究中,人参提取物治疗能够减轻疲劳的严重程度。据报道,人参还能减轻癌症和多发性硬化症患者的疲劳感。
编辑
NAD+/NADH
烟酰胺腺嘌呤二核苷酸(NAD+)是一种辅酶,它能够通过将电子从一个分子转移到另一个分子来促进多种代谢反应的发生。
在几项初步试验中,补充这种辅酶或其还原形式 NADH 有助于减轻运动引起的疲劳以及慢性疲劳综合症的症状。当同时补充 NADH 和辅酶 Q10 时,治疗效果更为显著。
关于长寿因子(NAD+)你了解多少?——健康益处及如何提高补充效果
β-丙氨酸
在多项针对不同年龄人群的研究中,β-丙氨酸能够延缓疲劳现象,其效果可达 36.5%。这可能得益于β-丙氨酸能减少高强度无氧运动过程中体内的酸性物质积累。
不过,需要注意的是,这种物质的安全性尚未得到充分验证。此外,在患有慢性疲劳综合症的人群的尿液中检测到了较高水平的这种化合物。目前还不清楚,是否通过补充β-氨基酸来提升血液中的β-氨基酸含量,真的能够引发慢性疲劳综合症。
褪黑素
褪黑素通常在睡前服用,被广泛用于缓解时差症状,如疲劳和睡眠不规律的问题。
在一项针对青少年运动员的临床试验中,运动后在傍晚时分服用褪黑素能够改善疲劳感、睡眠质量、认知表现以及整体健康状况。
褪黑激素对于患有慢性疲劳综合症的人来说通常无效,除非同时伴有这种激素分泌延迟的情况。褪黑素仅能在有睡眠问题的癌症患者中缓解疲劳症状。同样,它也有助于减轻患有创伤性脑损伤或正在接受手术患者的疲劳和睡眠障碍。
褪黑素的产生、功能、干预及其与肠道菌群的关系
支链氨基酸
补充支链氨基酸如亮氨酸、异亮氨酸和缬氨酸,比单纯补充其他氨基酸更能帮助运动后恢复。因为这些氨基酸能够减少肌肉疼痛、损伤以及疲劳感。
它们似乎还能通过补充运动过程中消耗的氨基酸来提高运动表现,不过并非所有研究都认为这种补充方法有效。然而,过量的这些物质会通过增加氨的产生而导致疲劳。
黄芪
在一项针对中风康复患者的临床试验中,口服黄芪补充剂显著改善了患者的疲劳感、认知功能以及生活质量。在一项针对晚期癌症患者的初步研究中,静脉注射黄芪提取物有助于缓解患者的疲劳症状。
一种由黄芪和红艾草提取物制成的制剂,在连续使用 4 周后,能够显著减轻慢性疲劳综合症患者的疲劳症状。这是一种含有黄芪的多味中药配方,能够增强运动员的体力,缩短他们的恢复时间。
D-核糖
一项针对纤维肌痛或慢性疲劳综合症患者的初步研究表明,每天摄入 5 克 D-核糖能够提升 45%的精力水平,并改善 30%的整体健康状况。
据报道,D-核糖还能有效缓解老年人的身体和精神疲劳。
灵芝
在一项针对神经衰弱患者的临床试验中,从灵芝中提取的复合碳水化合物使患者的疲劳感减少了 28%,且耐受性良好。
编辑
同样,灵芝孢子粉能够降低乳腺癌女性的疲劳、焦虑、抑郁症状,同时提升她们的主观幸福感。
5-HTP
在一项针对纤维肌痛症患者的小型临床试验中,给部分患者补充5-羟色氨酸后,有一半患者的疲劳症状及其他相关症状得到了改善。
姜黄素
在一项针对有职业压力相关焦虑与疲劳症状的患者的临床试验中,一种含有高生物利用度的姜黄素和葫芦纤维的组合制剂,其疗效优于传统的姜黄素制剂。
姜黄素与肠道微生物群之间的互作:姜黄素对健康影响的益处
编辑
注:这篇文章仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
谷禾健康
肠易激综合征(IBS)是一种肠—脑互动障碍,表现为反复腹痛,并伴有排便频率或性状改变。约三分之一的炎症性肠病(IBD)患者会出现相关症状,导致生活质量下降、心理负担加重和日常功能受损,也容易与小肠细菌过度生长、胆汁酸吸收不良及炎症后并发症混淆。
传统观点曾把IBD与IBS视为”非此即彼”的关系——有器质性炎症就不应再诊断功能性疾病。然而越来越多的证据表明,即便炎症进入缓解期,患者仍可能经历持续而真实的肠道症状,其背后是肠道屏障、菌群、神经信号等多层面的微妙改变。本文将带您解析这一“重叠地带”。
IBS:全球性的常见肠道困扰
肠易激综合征(IBS)在全球范围内都属于高发病,全球患病率约为10%–15%。这意味着每十个人中就有一两人可能受其困扰。
中国约每十人中有一人患IBS,且多见于中青年
中国的流行病学调查显示,IBS患病率约为6.5%–10%,且呈逐年上升趋势。它可发生于任何年龄段,但以中青年(18–59岁)更为常见,女性患病率略高于男性。
IBS虽不致命,却会造成巨大的医疗资源消耗——反复就诊、多次检查、长期用药。此外,IBS患者常伴有焦虑、抑郁等心理共病,以及消化不良、慢性疲劳等功能重叠综合征,进一步增加了诊疗的复杂性。
肠易激综合征的表现及病因
这种疾病是一种肠道与大脑相互作用的障碍,其特征为排便习惯的改变(如便秘、腹泻或两者兼有),以及腹痛症状——这些腹痛在排便时可能会缓解,也可能加重。
其特点是常规医学检查无法发现明确的结构或生化异常。发病机制可用生物—心理—社会模型解释,即生物、心理和社会因素共同参与疾病的发生与发展(见下图)。
编辑
doi.org/10.3390/jcm15010116
IBD 患者中 IBS 的患病率
炎症性肠病(IBD)是胃肠道慢性炎症性疾病,主要包括克罗恩病和溃疡性结肠炎。两者在炎症部位、肠壁受累范围及临床表现等方面均存在差异。
注:与肠易激综合征类似,IBD的病因尚未完全明确,遗传易感性和免疫失调被认为是主要影响因素。
三分之一的IBD患者会出现IBS样症状
约三分之一的慢性溃疡性结肠炎患者存在IBS样症状,这一比例远高于普通人群。研究显示,IBD患者发生IBS样症状的风险显著升高,风险比(HR)高达20.1(95%置信区间,p=0.005),且克罗恩病患者的发生率高于溃疡性结肠炎患者。
更值得关注的是,部分被认为处于”静止期”或”缓解期”的IBD患者,若同时存在IBS样症状,其肠道中可能存在常规检查未能发现的亚临床炎症或低度炎症活动。因此,IBD患者中”真正的IBS”与”残留炎症”的鉴别,成为临床的一大挑战。
检验肠黏膜炎症的方法
内镜检查是评估肠黏膜炎症的“金标准”。以内镜评估时,IBS样症状的患病率为23.5%,低于采用疾病活动度指数和粪便钙卫蛋白评估所得的33.6%和35.1%。
但内镜和粪便钙卫蛋白均无法全面评估肠黏膜免疫激活。即使检查显示疾病缓解,患者仍可能存在:
此外,IBS 样症状的患病率还受IBS诊断工具影响。Manning标准和Rome I~IV标准均基于症状制定,最初主要适用于无器质性胃肠道疾病者,直接用于IBD患者可能存在局限。
IBD患者即使符合Rome标准,其症状也可能源于其他IBD相关病理生理过程,而非真正的肠—脑互动障碍(DGBI)。例如:
编辑
doi.org/10.3390/jcm15010116
具有挑战性的过渡性视角
传统观点认为,只有排除可解释症状的器质性胃肠道疾病(如炎症性肠病,IBD)后,才能诊断肠易激综合征(IBS)。
如今,主流神经胃肠病学逐渐认为,IBD患者的IBS样症状可能与疾病活动度不一致,即肠黏膜炎症不足以解释其胃肠道症状。
早在1983年,就描述了这种“功能性”与“器质性”疾病界限模糊的现象:33%的缓解期溃疡性结肠炎患者符合基于症状的IBS诊断标准。该研究将“缓解期”定义为仅使用柳氮磺吡啶维持治疗,且柔性乙状结肠镜检查未见出血、黏液或接触性出血。
Tips
传统上,IBS 与 IBD 被视为互相排斥:有 IBD 就不应诊断 IBS。但越来越多证据显示,即使 IBD 的炎症已得到控制、处于缓解期,患者仍可能存在难以由炎症解释的 IBS 样胃肠症状。研究发现约三分之一缓解期溃疡性结肠炎患者符合 IBS 症状标准,提示两类疾病的界限并非绝对。
IBD病情监测方法多样,全球临床最常用的四种方式是粪便钙卫蛋白检测、横断面影像学检查、胃肠道内镜检查和患者症状评估。
编辑
doi.org/10.3390/jcm15010116
粪便钙卫蛋白:无创的炎症”侦察兵”
粪便钙卫蛋白是反映中性粒细胞迁移至胃肠道组织的指标。胃肠病学会一般认可其为一种经过验证的、无创的生物标志物,可用于评估 IBD 的内镜下及组织学炎症活动。
粪便钙卫蛋白判断疾病活动度的敏感性和特异性,会因所采用的临界值不同而变化。一项荟萃分析显示:
美国胃肠病学会采用 150 μg/g 作为参考临界值,用于判断克罗恩病或溃疡性结肠炎患者的胃肠道症状是否与炎症加重有关。
中国的核心判断大致为(仅供参考):
需要注意的是,粪便钙卫蛋白对小肠炎症的敏感性可能不足,而小肠炎症在克罗恩病中较为常见。因此,粪便钙卫蛋白正常并不能完全排除肠黏膜炎症。
横断面影像学检查
横断面影像学检查,如磁共振小肠造影和肠道超声,可以较完整地观察小肠,并评估 IBD 相关的肠外疾病。
肠道超声可能成为克罗恩病影像监测的新选择
磁共振成像被认为是监测小肠克罗恩病的金标准影像学方法。近二十年来,研究者越来越重视利用磁共振评估小肠运动功能。该方法有助于判断炎症负荷,但目前不能预测患者在接受生物制剂治疗一年后的治疗反应或是否达到缓解。
由于反复进行磁共振检查存在等待时间长、费用高等问题,床旁肠道超声逐渐受到重视。它具有费用较低、检查迅速、患者耐受性较好等优点,适合用于IBD 的动态监测。
一项最新系统综述总结了针对克罗恩病和溃疡性结肠炎建立的 23 种肠道超声评分系统。其中,83%的研究以内镜检查作为金标准。23种评分中有13种经过验证,但只有7~8种在两个以上的独立患者队列中得到验证。
这些评分系统最常纳入的指标包括:
床旁肠道超声在 IBD 中具有重要作用,可以评估治疗反应、提供预后信息,并帮助指导临床决策。
例如:
内镜评估
临床实践中广泛使用溃疡性结肠炎 Mayo 疾病活动指数。其中,内镜评分主要依据以下表现进行评估:
最初的 Mayo 评分还包括两项患者报告结局:
其他研究团队还提出了以下替代性评分工具:
组织学评估
目前,对于溃疡性结肠炎和克罗恩病的组织学缓解尚无统一定义。因此,在 IBD 管理中,组织学缓解目前属于辅助目标,而不是首要治疗目标。
此外,组织学缓解是否能够带来明确的预后获益,目前仍未得到证实。
患者报告结局指标
目前已有20种不同的患者报告结局指标,被用于评估 IBD 疾病活动度。但其中没有任何一种完全符合美国食品药品监督管理局(FDA)推荐的标准。
只有两种评分是在患者参与下开发的:
患者报告结局可能受到抑郁和焦虑的影响
抑郁症状较重的患者,更容易被判定为患有活动性 IBD。因此,依据 PROMs 判断疾病活动度时,应结合患者的心理症状进行解释。
近年来开发的两种 PROMs 可能较少受到伴随心理疾病的影响:
小结
区分IBD 活动、IBS 样症状和真正的 IBS,不能依赖单一检查:
肠易激综合征(IBS)等肠—脑互动异常疾病,通常是多种因素共同作用的结果,包括:
肠易激综合征的病理生理机制
编辑
doi: 10.3390/ijms262110598.
研究显示,无论 IBD 处于活动期还是缓解期,均可能影响上述各个环节。这些共同的病理机制,可能解释了IBS 与 IBD 之间的关联。
肠道运动改变
两项重要研究考察了 IBD 患者的肠道运动功能。与健康人相比,溃疡性结肠炎患者表现为:
溃疡性结肠炎患者排便控制能力受影响
溃疡性结肠炎患者静息时直肠运动明显减弱,但肠腔扩张可引起炎症直肠异常强烈收缩,增加排便控制难度,甚至导致失禁。
活动期患者的直肠顺应性明显降低,即直肠扩张和容纳粪便的能力减弱;缓解期患者则与健康人无明显差异。因此,活动期患者排便频繁、急迫,可能与直肠顺应性降低和高敏感有关。
上皮屏障破坏与黏膜免疫功能异常
组织活检显示,与没有 IBS 样症状的缓解期 IBD 患者或健康人相比,IBS 患者以及伴有 IBS 样症状的缓解期 IBD 患者,其上皮屏障完整性相关标志物——如 ZO-1 和 α-连环蛋白(α-catenin)——的表达较低。
肠道免疫激活在肠易激综合症中的作用
编辑
Stoyanova M,et al.Applied Sciences.2025
溃疡性结肠炎患者肠道通透性增加
这与另一项发现一致:缓解期溃疡性结肠炎患者存在结肠细胞旁通透性增加;混合型 IBS 患者也可能出现类似改变,但程度相对较轻。
黏膜中嗜酸性粒细胞数量增加及其活化,以及肥大细胞等其他免疫调节因素,可能促进肠道通透性增高,即通常所说的“肠漏”现象。
肠道菌群失衡
关于肠道菌群失衡,可以查看谷禾此前发布过的相关文章内容:
肠道菌群失衡的症状、原因和自然改善
炎症性肠病中宿主与微生物群的相互作用
肠道菌群失调与炎症性肠病的关联
多项研究探讨了肠道菌群在 IBS 和 IBD 发生发展中的作用,以及通过调节菌群进行治疗的可能性。宏基因组鸟枪法测序能够依据以下特征区分 IBS 与 IBD:
不过,目前尚缺乏研究比较以下三类人群的肠道菌群差异:
未来研究有望确定:IBD 患者中的 IBS 样症状是否具有独特的菌群特征,并寻找能够缓解持续性胃肠道症状的新型微生物治疗靶点。
肠易激综合征的多种因素
编辑
Stoyanova M,et al.Applied Sciences.2025
肠道—中枢神经系统的信息处理
肠神经系统主要由两个神经丛组成:
肠道炎症可能导致肠神经元丢失,并引起肠神经节——即位于胃肠道壁内的神经细胞集合——发生形态变化。这些改变可能促进内脏高敏感,并参与 IBS 症状的形成。
此外,心理应激也可能改变:
这些变化可能是缓解期 IBD 患者仍持续存在 IBS 样症状的原因之一。
先排除,再诊断,分层管理
当 IBD 患者出现急性排便功能改变时,首先必须考虑IBD 复发或炎症活动加重。
排除肠粘连、结石等疾病
在排除黏膜炎症复发、确认不需要升级免疫抑制治疗后,应通过详细病史和有针对性的检查,排查其他急性胃肠道症状原因,如:
积极诊断判断IBS
对于长期存在胃肠道症状的患者,IBS 的诊断应采取积极诊断模式,而不是单纯依靠排除其他疾病。也就是说,应根据典型症状主动判断 IBS。这样有助于:认可并解释患者的症状体验、减少焦虑、更早进行针对性治疗。
编辑
doi.org/10.3390/jcm15010116
但在 IBD 患者中采用这种诊断方式更具挑战性,因为他们更容易出现一些能够模拟 IBS 的其他疾病,包括:
针对缓解期 IBD 患者 IBS的主要干预措施
目前,专门针对缓解期 IBD 患者 IBS 样症状、并在随机对照试验中进行研究的干预措施主要包括:
目前没有充分证据表明,缓解期 IBD 患者的 IBS 必须采用与无 IBD 人群完全不同的管理方式。因此,通常应依据国际指南中的 IBS 一般治疗原则,结合以下两类措施:
非药物治疗:饮食调整、体育活动、心理治疗等;
编辑
doi.org/10.3390/jcm15010116
药物治疗:神经调节药、解痉药、止泻药、泻药等。
在炎症性肠病中管理肠易激综合征的药理策略
编辑
doi.org/10.3390/jcm15010116!
应特别关注心理因素
在 IBD 患者中,焦虑和抑郁的发生率分别可达约 三分之一和四分之一。这两种心理状况都与 IBD 患者的 IBS 样症状密切相关。
情绪障碍病史尤其能预测溃疡性结肠炎患者出现 IBS 样症状,但这一关系在克罗恩病中并不明显。
治疗方面,除常规药物外,可考虑:
这些措施共同体现了 IBS 的生物—心理—社会综合治疗模式。
腹痛的管理
至少四分之一的缓解期IBD患者报告存在慢性腹痛,42%的IBD患者未能获得腹痛治疗。缓解期克罗恩病患者的腹痛可能比缓解期溃疡性结肠炎更常见(克罗恩病:轻度腹痛与中重度腹痛比例较高;溃疡性结肠炎:轻度腹痛23.4%,中重度腹痛10.1%)。并且缓解期IBD中存在腹痛与生活质量下降有关。
腹痛的非药物治疗
腹痛的非药物治疗中,较有前景的方法包括:脑—肠行为治疗(可改善整体IBS症状和腹痛,也可能缓解焦虑、抑郁等心理共病)、低FODMAP饮食、放松训练。
•脑—肠行为治疗:伴有慢性腹痛的 IBD 患者更容易出现焦虑和抑郁。已有至少六项研究评估行为治疗,其中较有前景的方法包括:放松训练;改变与症状相关的认知。
不过,英国 IBD Boost 研究发现,接受为期 12 次、由专业人员支持的线上认知行为自我管理课程后,实验组与常规护理组在 6 个月时的腹痛评分没有明显差异。
•低 FODMAP 饮食:在 IBS 的各种饮食疗法中,低 FODMAP 饮食的证据基础较为充分。该饮食通常分为两个阶段:
荟萃分析及两项针对缓解期 IBD 患者的前瞻性研究均支持低 FODMAP 饮食有助于减轻腹痛。
一项多中心随机非劣效性试验显示,地中海饮食可以作为 IBS 的一线饮食干预,但其在“IBS 合并缓解期 IBD”患者中的效果尚未得到确认。
•体育锻炼:已有证据支持体育活动有助于改善 IBS 症状,但运动是否能够有效治疗 IBD 患者合并的 IBS,目前仍未得到证实。
腹痛的药物治疗
•阿片类药物(不建议):不建议使用阿片类药物治疗慢性腹痛。没有证据表明阿片类药物能够改善克罗恩病患者的腹痛或生活质量。
此外,IBS 患者使用阿片类药物与更严重的心理损害及更多医疗资源使用有关,还可能诱发或加重其他肠—脑互动异常疾病。
•脑—肠神经调节药物:一项纳入28项随机对照试验的荟萃分析支持三环类抗抑郁药(TCA)用于改善 IBS 的整体症状或腹痛;选择性 5-羟色胺再摄取抑制剂(SSRI)可能也能在一定程度上缓解腹痛。
在伴有 IBS 的缓解期 IBD 患者中,TCA 可中度改善整体健康感;这些患者中超过80%存在腹痛。TCA 作用于多种受体,可能引起:口干、嗜睡、视物模糊、疲劳、便秘。
•解痉药:东莨菪碱、双环维林和薄荷油等解痉药,可能通过减少平滑肌收缩及降低内脏敏感性来缓解 IBS 症状。
但目前支持其用于 IBS 腹痛的证据质量“非常低”,间接比较显示其疗效可能不如 TCA。
便秘的管理
约50%的溃疡性结肠炎患者存在“溃疡性结肠炎相关便秘综合征”,有时也称为“近端便秘”。这种情况通常发生在活动性左半结肠炎或远端结肠炎患者中。
其表现包括:
IBD 相关便秘可能与结肠神经支配异常、黏液分泌减少及肛门直肠协同障碍有关。
便秘的非药物治疗
•饮食:由于缺乏充分证据,目前指南不推荐某种完整饮食方案,例如高纤维饮食,作为 IBD 便秘的明确治疗方法。现有大多数饮食建议的证据质量仅为“非常低”或“低”。
•体育锻炼:体育活动不足会增加便秘风险,运动可能改善便秘,并缓解 IBD 和 IBS 患者常见的疲劳。
•盆底生物反馈治疗:生物反馈治疗基于操作性条件反射,旨在帮助患者认识排便障碍,训练排便时增加腹内压并放松盆底肌,以及在治疗师指导下通过气囊模拟排便。其对有、无 IPAA 的 IBD 患者有效率分别约为 86% 和 70%。
便秘的药物治疗
可使用泻药治疗便秘,通常建议采取逐步加药的方式。泻药包括:
•渗透性泻药:氧化镁、聚乙二醇;
•刺激性泻药:番泻叶、比沙可啶;
•促分泌剂:鲁比前列酮、利那洛肽;
•选择性 5-HT4 受体激动剂:普芦卡必利。
腹泻的管理
腹泻是IBD患者最常见的症状之一。一项研究中,30.6%的患者每天排便超过4次。缓解期IBD腹泻可能与肠道菌群多样性降低及结肠推进活动增强有关。
腹泻的非药物治疗
针对 IBS-D 和功能性腹泻,欧洲专家对以下治疗达成较强共识:
体育活动以及益生元、益生菌或合生元也可能有帮助。
腹泻的药物治疗
美国胃肠病学会对以下药物给出了条件性推荐:
注释:
洛哌丁胺和 eluxadoline 是阿片受体激动剂,能够抑制肠道运动。没有胆囊,或已知/疑似胆道或胰管梗阻的患者,严格禁止使用 eluxadoline。
利福昔明是一种不可吸收抗生素,美国已批准其用于 IBS-D。五项对照试验的荟萃分析显示,其治疗获益明确,治疗获益人数需治疗数(NNT)为9;北美指南支持其用于 IBS-D。
Alosetron 是选择性 5-HT3 受体拮抗剂,FDA 批准其用于女性 IBS-D 患者,但目前没有充分的性别特异性理由说明它只能用于女性。另一种 5-HT3 受体拮抗剂昂丹司琼,也有较有力的证据支持其用于 IBS-D。
研究显示,IBS-D 患者可能比其他 IBS 亚型患者更容易对低剂量 TCA 产生反应。TCA 可能通过抗组胺作用改善腹泻。选择性 H1 受体拮抗剂依巴斯汀也被发现能够减少 IBS 患者稀便的次数。这提示组胺生成和肥大细胞活性可能参与非活动性 IBD 的持续性腹泻。
关于解痉药治疗 IBS-D 的证据,主要来自“整体 IBS 症状缓解”,而不是腹泻本身。某项比较不同剂型薄荷油与安慰剂的研究发现,三组在粪便性状和排便频率方面均无显著差异,提示薄荷油可能不能改善腹泻。
此外,在 IBD 患者中,解痉药使用与更高的阿片类药物使用率及持续性腹痛有关,即使校正疾病严重程度后仍然如此。因此,解痉药可能疗效有限,甚至可能加重部分症状,使用时应谨慎。
粪便失禁的管理
粪便失禁是指反复且无法控制地排出粪便,至少影响 14% 的 IBD 患者,发生率接近社区成年人的两倍。
排便习惯改变,尤其是腹泻,与粪便失禁密切相关。评估时,以下信息最好通过连续排便日记记录,而非仅依靠一次性问卷。
IBD 患者发生粪便失禁的原因可能包括:
粪便失禁的非药物治疗
非手术治疗包括:
手术或介入治疗可包括:
目前结肠造口术或肛门括约肌成形术已较少使用。
粪便失禁的药物治疗
腹泻和直肠紧迫感是粪便失禁的重要危险因素,因此控制腹泻是关键。可考虑的药物包括:
腹胀的管理
腹胀是患者主观感受到的腹部饱胀、肿胀或气体滞留,可发生于腹部任何部位。腹胀不同于腹部膨隆,后者表现为腹围明显增大,患者常形容为“像气球”或“像怀孕”。
至少20%的缓解期 IBD 患者有腹胀症状,其发生率与 IBS 患者无明显差异。
腹胀的非药物治疗
•低 FODMAP 饮食:在功能性消化不良和 IBS 研究中,与传统饮食建议相比,低 FODMAP 饮食能够改善腹胀和生活质量。在伴有 IBD 和肠—脑互动异常症状的患者中,腹胀可能是对低 FODMAP 饮食反应最好的症状。
•脑—肠行为治疗:虽然相关证据主要来自 IBS,但心理治疗可能对各种肠—脑互动异常疾病都有帮助,包括以腹胀为主要表现的疾病。
注:一项随机对照试验显示,完成为期8周的正念减压训练后,患者在课程结束3个月时的腹胀严重程度有所改善。
•生物反馈治疗:部分腹胀或明显腹部膨隆患者存在腹膈协同失调,即膈肌收缩、腹壁放松的一种适应不良性神经肌肉反应。
一项研究提示,在对饮食干预没有反应的腹胀患者中,超过60%存在排便障碍特征,而这些患者可能从盆底生物反馈治疗中获益。
腹胀的药物治疗
利福昔明可能缓解腹胀,但 FDA 目前仅批准其用于 IBS-D 的两周疗程。
荟萃分析支持部分便秘患者使用解痉药和促动力药;促分泌剂及SSRI也可能有助于改善腹胀。
肠易激综合征(IBS)型症状影响了大约三分之一的慢性溃疡性结肠炎患者,严重降低了患者的生活质量,同时也给医生带来了诊断上的挑战。
医生需将其与小肠细菌过度生长、胆汁酸吸收不良、乳糜泻及其他炎症后并发症相鉴别。IBS 与溃疡性结肠炎的共存体现了功能性与器质性胃肠疾病的复杂“共生关系”,可能与残余炎症、脑肠信号异常、肠道菌群失调及心理社会因素共同相关。
未来研究应结合多种生物标志物进行评估,包括黏膜免疫表型、微生物群与代谢特征、神经影像学及屏障功能指标,以建立不单纯依赖症状的单一诊断方法。
临床上应采取以症状为中心的积极诊断策略,同时仔细排除活动性炎症,并据此制定治疗方案。现有证据支持参照一般 IBS 管理原则,采用饮食干预、脑肠行为疗法和神经调节剂,并关注疾病的心理社会影响。
未来应通过更精准的生物标志物动态监测持续炎症,以改善诊断并优化治疗指导。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献:
Butt MF, Reghefaoui MH, Benedict AS, Reghefaoui M, Al-Jabir H, Shaikh A, Vojtekova K, Moran GW, Corsetti M, Aziz Q. Irritable Bowel Syndrome in Inflammatory Bowel Disease: An Evidence-Based Practical Review. J Clin Med. 2025 Dec 24;15(1):116.
Aggeletopoulou I, Papantoniou K, Pastras P, Triantos C. Unraveling the Pathophysiology of Irritable Bowel Syndrome: Mechanisms and Insights. Int J Mol Sci. 2025 Oct 30;26(21):10598.
Stoyanova, M.; Gledacheva, V.; Nikolova, S. Gut–Brain–Microbiota Axis in Irritable Bowel Syndrome: A Narrative Review of Pathophysiology and Current Approaches. Appl. Sci. 2025, 15, 6441.
谷禾健康
编辑
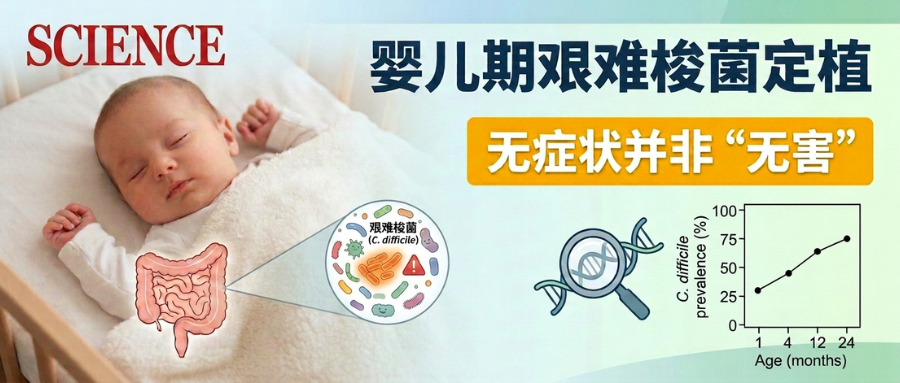
艰难梭菌(Clostridioides difficile)在成年人身上会引起严重的肠道感染,甚至致命性腹泻。但奇怪的是,它经常出现在婴儿的肠道里,孩子却看不出任何症状。
近日发表在《Science》的研究用新生小鼠做模型,发现艰难梭菌定植后,肠道上皮(覆盖肠道内壁的那层细胞)出现了明显的炎症反应和组织修复反应:与”损伤修复”相关的肠道干细胞群体明显增多,而干细胞的分化方向也被”带偏”了——更多地变成分泌型细胞(如产生黏液的细胞),而不是正常比例的吸收型细胞。
编辑
更关键的一点是:即使这些细菌只是短暂停留、后来被清除了,影响却留了下来。这些小鼠长到成年,肠道仍带着早期暴露的痕迹。
那么是什么造成的伤害?研究证明”元凶”是细菌产生的毒素:用不产毒的菌株去定植,幼鼠肠道安然无恙;而给母鼠接种一种针对艰难梭菌的mRNA-脂质纳米颗粒疫苗(技术原理与新冠mRNA疫苗同源),母体产生的抗体也能保护幼崽。
研究还把结论延伸到了人类:人类婴儿的肠道上皮细胞对这些毒素同样敏感;而从已定植婴儿身上取得的肠道活检样本,也显示出干细胞行为的异常改变。
这项研究的意义在于改写了一个临床惯例。目前儿科通常不对无症状婴儿的艰难梭菌做检测或治疗,因为”没症状就没问题”。但”没有腹泻”和”没有影响”是两回事——肠道上皮的重塑可能是无声的。
它也契合近年来“生命早期窗口期”的研究思路:生命最初几个月的微生物暴露,可能通过影响免疫训练和肠道屏障构建,在多年后才显现后果。
不过小编认为虽然研究的实验和设计非常创新和有范式意义,但是该谨慎还是谨慎,小鼠肠道发育与人类节奏差异比较大,人类那部分证据目前只是“关联性”的活检观察,尚不能证明婴儿期定植会导致具体的成年疾病(如炎症性肠病或过敏),长期随访的人群队列验证可能还是很有必要。
最有想象力的一环是母体疫苗策略。通过给孕产妇接种,让抗体经胎盘和母乳传递给婴儿——这条路径已在B族链球菌、RSV等病原体上被验证。如果艰难梭菌真被确认为早期发育的风险因素,这或许是最可行的干预方式。当然,从小鼠模型到临床应用,中间还有很长的路。
接下来一起共同学习和探讨下该研究。
既往研究显示,出生后两年内,40%~70%的婴儿存在艰难梭菌无症状定植。
一支来自美国费城的婴儿队列中,对健康婴儿粪便进行测序,得到几个关键流行病学事实:
1. 艰难梭菌定植率极高:
出生后第一个月内即有28.2% 的婴儿粪便检出艰难梭菌;到 2 岁时累计接近 75%。这一数字高于既往多数文献报告的 40%–70%。
编辑
doi: 10.1126/science.ady2886.
健康婴儿出生后前 24 个月粪便样本中艰难梭菌的检出率(A)与相对丰度(B)。样本量:1 月龄 n = 106,4 月龄 n = 139,12 月龄 n = 133,24 月龄 n = 87。相对丰度(B)以占总读数(reads)的百分比表示。上面 A、B 两图说明艰难梭菌在健康婴儿肠道中检出率高(通常 1–4 月龄达峰、随后随菌群成熟下降)。
从数字看,定植率随月龄快速攀升:出生一个月不到三成,两岁时接近四分之三。这条上升曲线本身就提示,定植更像是婴儿期微生物组装配过程中的一个常规事件,而非罕见的意外暴露。
2. 早期定植率与工业化程度相关:
以往关于婴儿艰难梭菌携带率的研究有一个明显偏差:采样人群绝大多数来自工业化社会。研究者因此做了一次跨地域的比较分析,按照联合国统计司的分类标准,把人群分为工业化、转型中、非工业化三类社会,比较其中婴儿的艰难梭菌携带情况。
编辑
采样国家分布图。颜色代表社会类型划分:工业化(红)、转型中(蓝)、非工业化(绿)、未采样(白)。饼图显示各类别的样本数量。
结果呈现出清晰的梯度:艰难梭菌在工业化社会的婴儿中,携带率和相对丰度都显著高于非工业化社会,而转型中社会处于两者之间的中间水平。
研究者对这一发现的解读相当克制,也相当有分量:这意味着本研究观察到的那些早期反应——上皮炎症、损伤修复型干细胞的富集、分化偏移——可能并不代表所有人群中”正常”的肠道发育过程,而只是暴露水平较高的人群中的特定状态。
由此他们提出一个假说:艰难梭菌的早期定植,或许是工业化塑造上皮-免疫发育轨迹、进而影响长期健康走向的一种新机制。
作者也坦率承认了数据的局限:他们的数据集本身存在测序偏差,工业化地区的样本占比过高。
为什么工业化会提高携带率?
文中没展开,但几条路径是可以推想的。剖宫产率高,婴儿错过了产道菌群的传递,肠道早期生态出现空位;配方奶喂养比例高,双歧杆菌等厌氧菌群建立得较慢,而这些菌通常能通过竞争和产酸抑制艰难梭菌;抗生素使用普遍,包括母亲产前预防性用药;医院分娩环境中艰难梭菌孢子的暴露机会更多;家庭环境更清洁,早期微生物暴露的多样性反而更低。这些因素在方向上是一致的——艰难梭菌是个机会主义者,它擅长填补生态真空。
它与”卫生假说”的关系值得注意,但也要小心。工业化国家过敏、自身免疫、炎症性肠病的高发,长期被归因于”微生物暴露不足”。这项研究提供了一个视角上的补充:问题也许不只是”接触的好菌太少“,还包括“接触了错误的菌”。文章提到的 ILC2、簇细胞减少,恰好落在过敏相关的 2 型免疫通路上——这个巧合让假说变得诱人。
3. 低丰度,高持留
值得注意的是 0.43% 这个丰度数字。它说明艰难梭菌在婴儿肠道里始终是“少数派”,从未占据主导。这留下了一个尚未区分的可能性:婴儿之所以无恙,究竟是因为上皮细胞对毒素有抵抗力,还是因为菌群把这种菌的数量压得足够低、毒素总量不足以致病?丰度数据本身回答不了这个问题——需要后续的小鼠实验来拆解。
但是这个属于典型的低丰度定植,长期以来,医学界因此把婴儿期的这种”定植”(细菌定居下来但不发病)当作无关紧要的现象,但是真的 “无危害”吗?
婴儿携带的是有毒素的致病菌
Science研究继续验证发现婴儿携带的是“真致病菌”:对 1 岁以内婴儿分离株的全基因组分析显示,这些菌株携带并表达毒素基因,且在系统发育上与从 2–18 岁儿童及 18 岁以上活动性感染患者体内分离的菌株聚在同一簇。换言之,婴儿肠道里的艰难梭菌并非“无害的特殊婴儿型”,而与真正致病的菌株没有本质界限。
婴儿、儿童与成人来源艰难梭菌菌株的基因组多样性
编辑
doi: 10.1126/science.ady2886.
这张图要回答什么问题?
正文里有一个绕不开的质疑:婴儿携带艰难梭菌却不发病,是不是因为他们运气好,碰上的都是“温和无毒”的菌株?如果答案是肯定的,整篇论文的立论就不成立了——那就只是细菌的差异,跟宿主没关系。
作者把 725 株细菌的基因组放在一起排系谱,看婴儿株会不会自成一族。
如果婴儿菌株真的特殊,图上应该出现明显的分层——婴儿株聚在某几个分支里,成人致病株聚在另外的分支里,泾渭分明。
实际结果是相反的:婴儿株散落在整棵树中,与来自活动性感染患者的儿童株、成人株交错分布,尤其集中在 Clade 1 这个占了 387 株(超过半数)的大家族里。加上 87.2% 的整体产毒比例,结论很直白——婴儿肠道里的艰难梭菌,也是能让成年人住进医院的那种艰难梭菌。
菌群研究长期偏向”丰度决定影响力”的直觉,但艰难梭菌的作用机制是分泌毒素——毒素是可以扩散、可以放大的。少量有毒菌照样能对邻近的上皮细胞造成持续的局部刺激。
以前两个旧假说的动摇留下了一个真正的空白。既然不是”受体没长好”,也不是”母乳里的抗体挡住了”,那婴儿为什么不腹泻?
这项研究给出的答案思路很有意思:也许婴儿并不是”没受影响”,而是受到的影响以另一种形式表现出来——不是急性腹泻,而是肠道上皮和干细胞层面的静默重塑。
为系统阐明生命早期艰难梭菌暴露对宿主的影响,研究建立了可重现人类婴儿无症状定植特征的新生小鼠模型(下图)。无需对母鼠或幼鼠进行抗生素预处理,艰难梭菌即可在新生小鼠体内定植,菌载量与既往成年小鼠感染模型相当。即使经口接种相当于成年小鼠致死剂量100倍的艰难梭菌VPI 10463菌株,新生小鼠仍未出现疾病或死亡(下图)。
编辑
doi: 10.1126/science.ady2886.
新生期内菌载量与毒素滴度保持稳定,断奶后降至检测限以下(下图)。此外,新生期的艰难梭菌定植并未显著影响早期菌群的演替进程或组成。
编辑
doi: 10.1126/science.ady2886.
艰难梭菌分泌两种外毒素——毒素 A(TcdA)与毒素 B(TcdB),二者是成年个体病理损伤的驱动因素。尽管新生小鼠在定植期间对疾病症状表现出强大抵抗力,但全身性给予重组毒素 B(rTcdB)会在 24 小时内导致 100% 死亡,提示这种保护是由局部机制而非全身机制赋予的。
编辑
doi: 10.1126/science.ady2886.
Tips
这个模型的关键设计优势
成年小鼠要被艰难梭菌感染,必须先用抗生素把原有菌群”清场”——否则健康菌群会把入侵者挡在门外。这带来一个长期困扰该领域的麻烦:你无法区分某个现象是感染本身造成的,还是抗生素破坏菌群造成的。
新生小鼠不需要这道手续。它们的菌群尚未成熟,本身就”门户敞开”。作者因此获得了一个干净的对照体系:菌群未被人为破坏,观察到的一切都可归因于细菌本身。这正是他们质疑此前 γδ T 细胞结论的立足点——那个模型用了广谱抗生素,而抗生素本身就会重塑免疫环境。
剂量对比揭示的保护强度
成年鼠需先破坏菌群、再用 1000 个孢子即可致死;新生鼠接受 100 倍剂量却毫发无损。这不是”轻微耐受”,而是量级上的差异——提示存在某种主动的保护机制,而非仅仅是暴露不足。
一个非常好的排除实验
如果新生鼠只是”毒素打不动”(比如受体不表达、细胞不敏感),那给它们注射纯化毒素也应该没事。结果恰恰相反:全身注射 rTcdB,24 小时内全部死亡。
这个结果的信息量很大。它说明新生鼠的细胞对毒素完全敏感、甚至更脆弱。保护不是”抗毒素”,而是“防毒素抵达”——某种发生在肠腔与上皮界面的局部限制,让毒素无法穿透屏障进入体循环。研究焦点由此被锁定在肠道局部。
近期研究表明,产生白介素-17(IL-17)的γδ T细胞是新生个体免于艰难梭菌相关死亡的关键介导者。但该模型采用广谱抗生素促进定植,因此γδ T细胞在无抗生素条件下是否具有同样的保护作用尚不明确。
研究发现,缺乏B细胞和T细胞(包括γδ T细胞)的RAG-1基因敲除新生鼠定植后仍受到保护,提示本模型中存在其他新生期保护机制。
编辑
doi: 10.1126/science.ady2886.
新生鼠艰难梭菌定植不引发中性粒细胞应答
在成年个体中,血液中性粒细胞计数及其向大肠的浸润是疾病严重程度的主要相关指标。因此作者推测,新生鼠在定植后中性粒细胞募集可能是受抑的。结果显示,新生鼠对艰难梭菌既无血液中性粒细胞扩增,也无向大肠的浸润,与成年鼠形成鲜明对比(下图)。
编辑
doi: 10.1126/science.ady2886.
而药物性减少感染期成年小鼠肠道中性粒细胞募集可显著降低疾病严重程度。综合来看,这些数据提示中性粒细胞扩增与募集的缺失参与了新生个体免于症状性疾病的保护,但其潜在机制很可能是多方面的。
免疫不成熟通过限制中性粒细胞炎症发挥保护
RAG-1 敲除鼠完全没有 T 细胞和 B 细胞,却照样活得好好的。这直接否定了”适应性免疫(含 γδ T 细胞)是必要条件”的说法——至少在无抗生素模型里如此。作者措辞很谨慎(”还有其他机制参与”),没有全盘否定既往工作,但实质上是把解释权收了回来。
中性粒细胞这条线则更接近答案。成人重症艰难梭菌感染的一个残酷真相是:杀死患者的很大程度上是自身的炎症反应——中性粒细胞大量涌入肠壁,在清除细菌的同时把组织一起破坏了。药理学抑制中性粒细胞募集反而能减轻成年小鼠病情,正是这一逻辑的直接证据。
新生鼠的免疫系统尚未具备发动这种猛烈募集的能力。于是出现了一个耐人寻味的转折:新生个体的”免疫不成熟”在这里不是缺陷,而是保护。没有过度反应,就没有自伤性损伤。
尽管未见明显的组织病理损伤,但是发现定植艰难梭菌的新生小鼠粪便中脂质运载蛋白-2 水平升高,提示炎症反应已被激活(图 F)。此外,从感染新生鼠中分离的肠道上皮细胞(IEC)表现出活力下降及剪切型 caspase-3 表达增加,说明存在炎症与病理损伤之间的脱耦联(图 G )。
编辑
doi: 10.1126/science.ady2886.
编辑
doi: 10.1126/science.ady2886.
原文描述的很清楚,炎症在发生(脂质运载蛋白-2 升高、干扰素与 NF-κB 通路激活);细胞在死亡(活力下降、caspase-3 剪切);但组织完好无损(无病理评分升高、无中性粒细胞浸润、幼鼠活蹦乱跳)。
在成年个体里这三者是绑在一起的——炎症导致细胞死亡,细胞死亡导致屏障崩塌,屏障崩塌导致重症。新生个体把这条链在最后一环切断了。
断链的机制在哪:增殖
答案藏在 STAT3 与 Ki67 里。IL-6/JAK/STAT3 通路在肠道中是经典的再生轴——它既是炎症信号,也是驱动干细胞增殖修复的信号。Il22 上调同样指向这一方向(IL-22 是促上皮修复的关键细胞因子)。再加上 G2M 检查点、E2F 靶基因(细胞周期驱动因子)、MTORC1(合成代谢与生长),以及 Ki67 阳性细胞集中在腺体基部(干细胞与祖细胞所在位置)。
进一步推测新生肠道并非避免了细胞死亡,而是用更快的补充速度追上了损失速度。可以理解为一场竞速:毒素在顶端杀死细胞,干细胞在基部加速生产新细胞。只要生产不落后于损耗,屏障就始终连续,毒素就进不了体循环。这与上一节”全身注射毒素 24 小时内 100% 死亡”证据吻合——细胞对毒素毫无抵抗力,保护全靠屏障维持。
72 个基因”这个数字值得琢磨:72 个 DEG,对于一场能杀死成年动物的感染而言,是相当克制的转录响应。而且 67:5 的上调比压倒性偏向”启动防御”,而非”关闭功能”。
上调基因分两组,各有含义。Reg3g、Ltf(乳铁蛋白)、Slpi、Lcn2 属于抗菌肽与营养限制类——上皮自己动手压制细菌,靠夺取铁等资源而非召唤免疫细胞。而 Cxcl5 是中性粒细胞趋化因子,Ly6g 更是中性粒细胞的标志分子。这里出现一个耐人寻味的矛盾:招募信号发出去了,但中性粒细胞没来(上一节已证实)。这提示阻断点不在上皮的”呼叫”环节,而在下游的响应端——新生个体的骨髓储备不足、或中性粒细胞本身迁移能力尚未成熟。上皮在号召,只是没细胞应答。而这恰恰救了幼鼠一命。
下调的细胞骨架基因
Arhgap20、Cyria 都参与 Rho GTPase 与肌动蛋白动态调控。这不是巧合——TcdA/TcdB 的分子作用机制正是糖基化失活 Rho 家族 GTPase,导致肌动蛋白骨架解体、细胞连接丧失。骨架相关基因的转录改变,是毒素在新生上皮内确实发挥了作用的分子指纹。毒素起效了,只是后果被增殖代偿掉了。
研究团队将新生上皮特异性的转录应答与既往发表的成年小鼠艰难梭菌感染期全结肠基因特征进行了比较分析。
编辑
doi: 10.1126/science.ady2886.
结果发现,新生期 DEG 与成年急性感染时间点(AD3–AD5)的 DEG 高度交叠,而在恢复期(AD8、AD10)相关性下降。此外,GSEA 显示新生鼠呈现出与感染成年小鼠相似的通路应答。
这个结果的含义相当反直觉:新生上皮的分子状态,等同于重症成年个体的急性期状态。它们并没有”温和地”应对细菌——从转录组看,它们身处一场急性感染的正中央。区别只在结局:成年个体从这个状态走向组织破坏与死亡,新生个体停在这里,然后靠增殖把损伤填平。
于是全篇的论点收束为一句:决定生死的不是有无炎症,而是上皮能否跟上修复的节奏。
上皮细胞在”备战”,也在”抢修”
基因集富集分析(GSEA)显示,被定植幼鼠的肠道上皮出现了多条炎症通路的激活痕迹:干扰素-γ 和干扰素-α 信号特征、TNF-α 经 NF-κB 的信号通路,以及IL-6/JAK/STAT3 通路的活化。
其中 STAT3 这条线值得单独说。研究者检测到磷酸化 STAT3 水平升高,同时 Il22 表达增加——这两个信号组合起来,是上皮再生反应正在进行的经典标志。与此呼应,GSEA 还富集到了损伤应答、细胞周期和增殖相关的通路:G2M 检查点、E2F 靶基因、MTORC1 信号。最后用 Ki67 染色直接验证了这一点:被定植幼鼠的肠腺基底部(crypt base)增殖活性明显增强。
所以画面是这样的:上皮细胞一边释放炎症和抗菌信号,一边加速分裂修补自己。表面风平浪静,底下工地开工。
新生鼠无症状定植掩盖急性感染样分子反应
研究者随后把幼鼠上皮的转录反应,与已发表的成年小鼠艰难梭菌感染时的全结肠基因特征做了比对。结果颇具冲击力:幼鼠的差异表达基因与成年鼠急性感染期(第 3–5 天)的基因高度重叠;而随着成年鼠进入恢复期(第 8–10 天),这种相关性就下降了。通路层面的分析也得出同样结论——幼鼠的反应模式,近似于一只正在生病的成年鼠。
这是个很有说服力的论证。它说明幼鼠的”无症状”只存在于宏观层面:在分子层面,它们的肠道正在经历一场急性感染。
关键发现:干细胞被推向了”损伤模式”
既然增殖和再生信号如此突出,研究者转向直接检验肠道干细胞(ISC)的功能。他们在出生后第 14 天分离幼鼠的肠道干细胞,培养成结肠类器官(organoid)——这是评估干细胞功能和再生潜力的标准手段。
来自被定植幼鼠的干细胞表现出:
•更高的类器官形成效率(OFE)
•更高的偏心率(即形状更不规则,圆度下降)
•更多的芽状突起(budding)
这些形态特征通常意味着再生潜力和分化活动都被增强了。
更精确的机制来自两类干细胞的区分。
LGR5⁺ 干细胞负责肠道上皮的日常更新,是”常规维护工”;SCA-1⁺ 干细胞(表达 Ly6a)则专门负责损伤后的修复,是”应急抢修队”。
数据非常清晰:Ly6a 是被定植幼鼠上皮中上调最显著的基因之一,而 Lgr5 表达没有变化。流式细胞术进一步确认了 SCA-1⁺ 干细胞的富集。
换句话说,幼鼠的肠道并没有停止日常运转,而是额外启动了应急修复系统——身体判定这里发生了损伤。
新生期定植艰难梭菌重塑干细胞并留下持久记忆
除干细胞身份外,分化去向也被重塑。分泌型标志普遍上调:Dclk1(簇/tuft cell)、Muc2(杯状细胞)、Chga(肠内分泌细胞);而吸收型结肠细胞标志Apob无明显变化。荧光显微镜亦证实MUC2⁺杯状细胞增多。
更关键的是,这些改变持久存在:新生期定植、断奶后细菌已清除的小鼠,至8周龄成年仍较对照呈现杯状细胞(MUC2⁺)扩增,且DCLK1⁺簇细胞减少。
编辑
doi: 10.1126/science.ady2886.
编辑
doi: 10.1126/science.ady2886.
体外结果进一步支持细胞“记忆”:离体传代10次后,这些干细胞仍保留增强的增殖潜能与特殊类器官形态;Muc2和Chga表达仍有升高趋势,Ly6a持续高表达,而Lgr5下调。由于此时细胞已脱离细菌、毒素与免疫信号,“记得”的改变更可能是细胞内在(cell-intrinsic)的表观遗传重塑,而非依赖持续外界刺激。
编辑
doi: 10.1126/science.ady2886.
最后,体内谱系追踪表明杯状细胞增多由经典LGR5⁺干细胞分化路径驱动。综上,作者认为艰难梭菌在幼鼠上皮诱导两条并行反应:损伤修复型干细胞的出现以促进再生,以及LGR5⁺干细胞分化程序的重编程。
留下的印记有什么后果?
杯状细胞可以充当某些肠道病毒的复制场所——包括小鼠星状病毒。研究者据此做了一个功能性验证:新生期被定植过的成年小鼠,在感染病毒 12 天后,粪便中的病毒载量高于对照组。
也就是说,早年的细菌暴露改变了肠道的细胞构成,而这种构成上的偏移,在成年后转化为对另一种病原体的易感性升高。
作者也坦诚地报告了阴性结果:新生期的预定植对成年后的艰难梭菌感染既没有保护作用,也没有加重病情——体重下降和上皮损伤都没有差异。
此外,成年期感染会导致类器官形成能力下降,无论此前是否被定植过。这与已有研究一致:成年期的艰难梭菌感染会损伤肠道干细胞、削弱上皮恢复能力。
关于那个”传代 10 次”的实验,值得强调它在逻辑上解决了什么问题。观察到成年小鼠仍有细胞组成异常,其实有多种解释:可能是持续的低水平炎症在维持,可能是菌群结构被永久改变了,也可能是免疫记忆在起作用。而离体类器官实验把所有这些外部因素都剥离了——细胞在培养皿里传了十代,环境完全人工,改变依然存在。剩下的解释就只有一个:干细胞自身可能被改写了。
不过这里有个作者也未回避的软点:Muc2 和 Chga 在传代后只是”呈现升高趋势”,也就是没有达到统计学显著。这说明细胞内在记忆的证据在形态和生长层面很强,在具体分化基因层面则相对弱一些。真正的机制层面还缺一块拼图——如果是表观遗传,那么是 DNA 甲基化、组蛋白修饰,还是染色质可及性的变化?这需要 ATAC-seq 或甲基化测序来回答,是后续研究的明显方向。
编辑
doi: 10.1126/science.ady2886.
免疫细胞也留下了长期痕迹
由于肠道上皮与免疫系统存在密切的双向对话,研究者进一步评估免疫层面的变化。他们对新生期定植后小鼠在4周龄与8周龄的结肠固有层免疫细胞做免疫分型,发现两类先天淋巴细胞显著减少:GATA3⁺的2型先天淋巴细胞(ILC2)和RORγt⁺的3型先天淋巴细胞(ILC3)。
值得注意的是其“选择性”:辅助性T细胞亚群无变化,髓系细胞群亦不变。研究者还排除了一个直观的替代解释——这些长期免疫改变并非由持续的菌群失调所致;作者虽然谨慎指出,早期短暂的菌群组成或功能波动仍可能部分参与。
关键的机制实验:是毒素,不是定植本身
这是全文逻辑上最严密的一部分。研究者要回答一个二选一的问题:上皮的这些改变,究竟是毒素造成的,还是仅仅”有细菌住进来”就够了?
他们用了四组互相印证的实验:
•第一:体外直接给新生小鼠的肠道上皮细胞加入重组毒素 B——细胞存活率显著下降。毒素本身足以造成损伤。
•第二:用从健康人类婴儿体内分离出的产毒株和不产毒株分别定植幼鼠。两株菌的定植量相当,产毒株那组粪便中也检出了相应水平的毒素,且幼鼠都没有发病。但差异出现在细胞层面:产毒株组的上皮细胞存活率下降、Lcn2、Reg3g、Slpi 等基因上调;不产毒株组则完全没有这些变化。产毒株组的干细胞也表现出类器官形成效率、偏心率、芽状突起的增加。
编辑
doi: 10.1126/science.ady2886.
•第三,也是最干净的一组:用野生型 R20291 菌株与其同源的 ΔtcdA ΔtcdB 双敲除突变体做对比。这两株菌在遗传背景上几乎完全一致,唯一的区别就是能不能产毒素。结果只有野生型引发了那些表型。
•第四,长期效应也同样依赖毒素:离体传代 10 次后仍保留的类器官表型,成年后持续存在的杯状细胞和肠内分泌细胞增生,以及先天淋巴细胞的减少——全部只出现在产毒菌株定植的小鼠身上。
结论因此非常明确:新生期上皮的这些反应,源于毒素对肠道干细胞的作用,而不是细菌定植本身。
母体接种疫苗,能保护下一代
既然母体可通过脐带血和母乳将抗艰难梭菌抗体传给后代,研究者便用此思路设计了多价 mRNA-脂质纳米颗粒疫苗来实现母体免疫。
编辑
doi: 10.1126/science.ady2886.
接种母鼠后,幼鼠胃内容物与粪便中可检测到抗 TcdA、抗 TcdB 的 IgG 与 IgA;但抗体并未降低肠道菌载量。相应地,幼鼠粪便毒素滴度下降、上皮细胞存活率提高,Ki67 显示的过度增殖被减弱。更关键的是,幼鼠干细胞长出的类器官与未被定植对照几乎一致,过度增殖与异常分化均被逆转;且保护可持续,母鼠后续新生窝崽同样受益。
值得一提的是,疫苗并未清除细菌,只是中和毒素——而这已经足以保护发育中的肠道。该结果也与前述机制结论相互印证:若毒素是元凶,中和毒素就足够了。
在人类身上的验证
最后研究者转向人类样本。首先,被定植的人类婴儿粪便中脂钙蛋白水平升高,与小鼠模型一致。
随后他们获取了5 名婴儿患者的结肠活检样本,并配对粪便样本以确定定植状态。结果:
其中一名被定植婴儿的活检 RNA 显示 Ly6a、Muc2、Chga 升高,而Lgr5、Dclk1、Apob 无变化——与小鼠模型的模式高度吻合;
人类婴儿的肠道上皮细胞在毒素处理下出现剂量依赖性的细胞死亡和屏障功能下降;
来自两名被定植婴儿的类器官,在多次传代中都表现出增殖和分化增强,Ly6a、Muc2、Chga表达升高。
编辑
doi: 10.1126/science.ady2886.
作者由此提出:艰难梭菌毒素对人类婴儿肠道干细胞有直接作用,这挑战了”婴儿肠道上皮天生对艰难梭菌毒素有抵抗力”这一长期假设。但他们也明确写道:样本量有限,需要未来研究进一步验证。
特别注意
先说这项研究最强的一环。ΔtcdA ΔtcdB 同源突变体那个实验是分子微生物学中的“金标准”设计——两株菌除了毒素基因外基因组完全相同,因此任何表型差异都只能归因于毒素。加上体外重组毒素实验(充分性)和不产毒临床株实验(必要性),这些结果为毒素介导肠道损伤的因果作用提供了较为有力的实验支持。
母体疫苗的部分在概念上很优雅,尤其是”不清菌、只中和毒素”这一点。它暗示了一种温和的干预哲学:不必扰动婴儿正在建立的菌群生态,只需要拦掉那个有害的分子。这比用抗生素清除细菌要合理得多——后者可能造成比艰难梭菌本身更大的发育扰动。
其最容易被过度解读的地方。5 例活检,其中用于基因表达比较的实际上是 1 例定植 vs 1 例未定植;类器官来自 2 例。这个规模无法做任何统计学推断——它是病例观察,不是队列证据。个体间的肠道基因表达差异本身就极大,受年龄、饮食、用药、活检部位、就诊原因等无数因素影响。而且这些婴儿是”患者”,本来就因为某种疾病在接受结肠活检,这本身就是一层混杂因素。
所以这部分数据的正确定位是:它证明了”人类婴儿的细胞对毒素敏感”(这部分有体外剂量反应曲线支持,比较可靠),并提供了”人体内也可能发生类似改变”的初步线索(这部分只是提示)。 它不能证明人类婴儿被定植后真的会发生持久的干细胞重编程。作者在结论中保留了这一点,比较谨慎。
关于 ILC2 和 ILC3 的减少,这条线索的潜在意义可能比文中着墨的分量更重。ILC3 参与维持肠道屏障和抗菌肽分泌,与炎症性肠病风险相关;ILC2则参与 2 型免疫,与过敏和哮喘有关。有趣的是,ILC2 的减少与前面提到的簇细胞减少在生物学上是一致的——簇细胞和 ILC2 之间存在一个正反馈回路(簇细胞分泌 IL-25 激活 ILC2)。
两个环节同步下降,说明整条 2 型免疫轴在发育中被压低了。这为”早期定植是否影响成年后过敏性疾病”提供了一个具体的机制假设,但要强调这仍然只是假设——文中并未测试这些小鼠的过敏或炎症表型。
小编想先指出文章讨论里最值得称赞的一句话,也是最容易被忽略的一句:”或者反而以某种方式对宿主发育有益”(or alternatively shape host development in beneficial ways)。
这句话把研究立意和读者从”揭露威胁”拉回到了“提出问题”。仔细想,它有充分的理由存在。杯状细胞增多意味着黏液层加厚、屏障更强;损伤修复型干细胞的富集意味着组织具备了更强的应变能力;轻度的炎症暴露在免疫训练中往往是必需的,而不是有害的。
生命早期的免疫系统需要”练兵”,一个不产生疾病、但确实引发反应的刺激,理论上完全可能是一次有益的训练。研究者观察到的所有现象,在生物学上都可以被读成“损伤”,也可以被读成“适应”。
目前的数据无法区分这两种解读——它只证明了变化是真实的,没有证明变化是坏的。唯一那个偏向”坏”的证据是星状病毒载量升高,而这是单一实验、单一病毒、单一指标。
正因如此,最后关于临床实践的那段话需要谨慎对待。“重新评估把婴儿携带视为良性的惯例”这句话,作者措辞其实非常克制——说的是“重新评估”,不是“应当治疗”。但这类句子在传播中容易变成”婴儿携带艰难梭菌需要治疗”,就偏离了原文——论文讨论的是预防毒素损伤,而非清除定植本身。
理由很直接:目前没有证据表明清除定植能给无症状婴儿带来净收益,而清除的代价是明确的。抗生素处理一个无症状状态,必然扰动正在建立的菌群——而论文自己的数据显示,艰难梭菌定植本身并未显著改变早期菌群的演替。也就是说,很可能是治疗的扰动大于细菌的扰动。更何况到 2 岁累计有约 75% 的婴儿被定植,这意味着任何以清除为目标的方案都会变成一场针对大多数婴儿的干预,微小副作用也会被放大为公共卫生问题。
值得注意的是,这篇论文选择的路径并不是清除——母体疫苗针对毒素,细菌仍留在肠道里。
不杀菌、不扰动生态,只中和那个有害分子。如果这条路走得通,它在成本-收益结构上远优于抗生素干预。但同样要说清楚,那还只是小鼠数据。
最后,小编还是想把这项研究放在一个更长的脉络里看。过去二十年,”发育起源假说”(DOHaD)的核心洞见是:许多成年期疾病的根源可以追溯到生命最初的窗口期。而微生物组研究给这个假说提供了一个具体的作用机制。这项研究的真正贡献,或许不在于它对艰难梭菌下了什么判决——它其实没有下判决——而在于它示范了一种研究范式:当判断一个早期微生物是否”有害”时,不能只看它是否引起症状,而要看它是否改变了发育本身。
按这个标准重新审视婴儿肠道里的其他“沉默住客”,恐怕不止艰难梭菌一个需要重新体检。这大概是这篇论文留下的最有价值的问题。
总而言之,这项工作把艰难梭菌从”成年病人的致病菌、婴儿肠道的无害过客”重新定义为一个被低估的早期生命病原体:它在婴儿不发热、不腹泻的平静表象下,悄然改写肠道干细胞的分化程序和黏膜免疫的发育轨迹,并把痕迹留到成年。对于临床,这提示重新审视婴儿期艰难梭菌检测与管理的边界;对于公卫,这为理解工业化与免疫代谢疾病的关联投下了一道新的光。
谷禾健康
一个炎症性肠病(IBD)患者,刚确诊时,医生告诉他要注意饮食,于是他可能会经历这样一个过程:
先是开始少吃辛辣、油炸食品。
后来听说乳制品可能刺激肠道,于是戒掉牛奶。又看到有人说麸质不好,面包也不吃了。
再后来是粗粮、豆类、生冷蔬菜、水果、坚果
……
每一次腹痛、腹胀或者腹泻,都可能让一种新的食物进入“黑名单”。
编辑
这种现象并不罕见。2018 年一项针对 294 名荷兰成年 IBD 患者的调查显示:
编辑
这类数据并不能代表所有 IBD 患者,但足以说明:对许多人来说,饮食是疾病管理中最容易主动掌控的一部分。
问题也由此出现:如果某种限制能让人感觉好一点,那么限制得更多、更彻底,会不会更安全?如果症状减少了,是不是说明肠道炎症也控制住了?
科学界正在重新审视这个逻辑。
本文系统梳理了特定碳水化合物饮食(SCD)、低FODMAP、无麸质、无乳制品…这些限制性饮食常被用于应对不同的健康困扰,但它们带来的匹配获益,是否足以抵偿长期坚持所付出的营养、微生态、心理和现实成本?
本文不预设限制性饮食应当被推崇或否定,而是尝试追问:对谁有益、依据有多充分,又要付出什么代价?当明确依据有限时,我们应如何判断一种饮食限制是否值得长期坚持?
编辑
限制性饮食之所以有吸引力,很大程度上来自一个符合直觉的推理:既然某些食物可能带来症状,把它们排除以后感觉舒服了一些,那么意味着排除得更加彻底,也许效果会更好。
特定碳水化合物饮食(specific carbohydrate diet,SCD)是一个典型例子。
特定碳水化合物饮食 vs. 地中海饮食——限制更多的一方,没有明显优势
特定碳水化合物饮食(specific carbohydrate diet,SCD)是 IBD 患者中较常见的限制性饮食之一。通常限制谷物、复杂碳水化合物、多数乳制品和加工食品。
早期一些病例和观察性研究报告过症状改善,但样本量、随访时间和对照质量都有限。
编辑
2021 年,发表于《Gastroenterology》的一项DINE-CD 的多中心随机对照试验,给了研究者一个很直接的比较机会:SCD与地中海饮食,谁对轻中度症状的成年克罗恩病患者更有帮助?
研究纳入有轻中度症状的成年克罗恩病患者,194 人被随机分配到 SCD 或地中海饮食组,191 人进入有效性分析。前6 周由研究方提供符合方案的餐食和零食,之后患者自行执行饮食。
第 6 周,两组差异没有统计学意义。结果如下:
编辑
也就是说,在这组轻中度症状的成年人中,限制明显更多的SCD,并没有因为“管得更严”而获得更好的症状缓解或炎症指标应答。
无麸质、无乳制品——有适应证时有价值,长期坚持缺少依据
无麸质和无乳制品饮食也需要区分适应证。
如果 IBD 患者同时存在乳糜泻——严格无麸质饮食当然是必要治疗;
如果明确有乳糖不耐受——减少乳糖摄入也可能明显改善腹胀、腹泻等症状。
到了没有这些适应证的IBD患者身上,证据就弱得多。
目前没有高质量随机对照试验证明,没有乳糜泻的IBD患者通过长期戒除麸质可以改善炎症结局。无麸质饮食还可能降低膳食纤维、叶酸、维生素B12、维生素D、铁和钙等营养素的摄入,同时增加饮食成本。
乳制品也有类似情况
两项规模较小的UC维持期研究共纳入77名患者,12个月时,无奶饮食组临床复发率为59%,对照组为68%,RR=0.83,95%CI 0.60~1.15,差异没有达到统计学显著;内镜和组织学复发的数据也不足以支持明确结论。
与此同时,长期排除乳制品还需要考虑钙和维生素D不足。
因此,对于长期忌口的患者,可以定期问问自己:这项限制当初为什么开始,今天还需要吗?
当严格程度增加,却没有获得与之相匹配的疾病获益,长期越来越窄的饮食范围,会不会同时付出其他代价?
编辑
限制性饮食当然有它的临床位置。疾病活动期、存在梗阻风险、明确食物不耐受,饮食调整本身可以是治疗和症状管理的一部分。
需要权衡的是,当一种长期限制没有显示出与其严格程度相匹配的疾病获益时,那么营养、心理、微生态、成本和可执行性代价就应被重视。
营养代价 | 过度忌口,加重营养风险
IBD 患者本身就容易出现营养问题。慢性炎症、食欲下降、腹泻和吸收障碍,都可能影响营养摄入和吸收,药物及既往手术也可能增加这一风险。
如果此时又长期排除多个食物类别,问题就容易叠加。长期忌口、食物种类不断减少,则可能进一步造成能量和蛋白质摄入不足,铁、维生素 B12、叶酸、维生素 D、锌和钙等营养素缺乏的风险增加。
看似正常的体重,也可能出现营养问题
即使体重没有明显下降,患者仍可能出现肌肉量减少,甚至发展为肌少症。研究指出,IBD 患者的肌少症与住院、术后并发症、生物制剂治疗反应较差及生活质量下降有关。
编辑
对于儿童和青少年,具有更高的营养需求,营养不足还可能影响生长发育、青春期发育延迟、骨矿化不足等。
因此,饮食管理里不是说只盯着“这顿饭有没有让我拉肚子”,也要看长期能量、蛋白质和微量营养素有没有跟上。
AGA 2024年临床实践更新提出,IBD患者需要定期接受营养不良筛查,并关注维生素D和铁;对于广泛回肠病变或既往回肠手术患者,还应特别关注维生素B12。
微生态代价 | 过度忌口,可能改变肠道菌群
长期限制还有一个容易被忽视的矛盾:很多人减少食物种类,是为了保护肠道,但肠道微生物同样依赖我们每天吃进去的食物。全谷物、豆类、蔬菜、水果中的多种膳食纤维和可发酵成分,可被肠道微生物利用,并生成包括乙酸、丙酸、丁酸在内的短链脂肪酸。丁酸被认为参与肠上皮屏障完整性和免疫调节。
研究指出,饮食多样性与肠道微生物群的多样性和韧性有关;长期减少可发酵纤维,可能伴随部分有益菌减少和短链脂肪酸生成下降。
因此,食物越来越单一带来的变化,可能不只表现为少摄入了几种维生素。长期饮食结构怎样改变肠道生态,也逐渐成为IBD营养研究的重要方向。
心理代价 | 焦虑:从谨慎进食到害怕吃饭
当食物不断被分成安全和危险,正常进食很容易变成持续的风险评估。
今天腹痛,就开始回想中午是不是吃错了什么;
明天排便次数增加,又从菜单里删掉一样。
随着这种模式不断重复,可选择的食物越来越少,
即使疾病已经稳定,患者也可能仍然不敢尝试过去停掉的食物。
这种模式在部分患者中会发展为明显的食物焦虑,甚至达到回避/限制性食物摄入障碍(avoidant/restrictive food intake disorder,ARFID)的标准。
注:回避/限制性食物摄入障碍是一种进食障碍。患者可能因为害怕进食后的不良反应、对食物的气味或质地敏感,或者缺乏进食兴趣,长期回避某些食物或限制摄入量,进而出现营养不足、体重下降或社交功能受损。与神经性厌食症不同,ARFID 通常与追求瘦身或对体重、体形的不满无关。
2025 年一项多中心研究纳入 325 名 IBD 患者,17.8% 符合 ARFID 标准;
即便只看没有客观活动性炎症的患者,仍有 16.3% 符合标准。
对于这部分疾病处于非活动状态的患者,胃肠道相关焦虑是显著预测因素。
一项包括国内四家三甲医院的消化内科门诊进行的横断面研究,共有 483 名患有炎症性肠病的患者完成了问卷调查。其中,20.3%的患者符合急性回避障碍的临床标准。急性回避障碍的平均得分为 21.9 分。
编辑
多变量逻辑回归分析结果显示,以下因素与急性回避障碍的发生有显著关联:患有克罗恩病的患者(比值比为 0.483,95%置信区间:0.280-0.835;p=0.009);处于活动性疾病状态的患者(比值比为 0.220,95%置信区间:0.123-0.392;p<0.001);具有与症状控制相关的饮食观念的患者(比值比为 2.431,95%置信区间:1.299-4.548;p=0.005);以及有特定饮食史的患者(比值比为 27.158,95%置信区间:3.679-200.456;p=0.001)。
回避/限制性食物摄入障碍(ARFID)不是以减重为目的的节食
患者可能因为害怕腹痛、腹泻等进食后果,对食物气味或质地敏感,或者逐渐缺乏进食兴趣,持续回避食物或限制摄入,最后影响营养、体重和社会功能。
当限制不断扩大、即使病情稳定也不敢重新引入食物时,饮食管理已经不仅是营养问题,也可能成为心理和生活质量问题。
执行代价 | 方案越复杂,现实中的坚持越困难
严格饮食还会带来很实际的负担:购买特殊食材、阅读配料表、自己准备餐食、减少外食、额外使用营养补充剂,以及更多的时间和经济成本。
临床试验中的退出率,可以部分反映这种负担。
提供预制餐 V.S. 自行备餐
提供预制餐:2026年一项对62项IBD饮食试验、共3523名参与者进行的Meta研究显示,总体未完成率约为16%。
自行备餐:其中最显著的例子是 PRODUCE 试验,在该试验中,特定碳水化合物饮食组44%的参与者退出。
编辑
研究者还注意到,由研究团队直接提供餐食的试验,完成情况往往好于需要参与者自行采购和准备食物的试验。换句话说,进入真实生活以后,复杂饮食的执行难度可能还会进一步增加。
当这些问题被放到一起,IBD长期饮食管理的方向也开始发生变化。
编辑
如果长期饮食限制既没有稳定显示出更好的疾病控制,又可能伴随营养、微生态、心理和执行方面的成本,那么研究自然会开始寻找另一种路径:在疾病条件允许的情况下,尽量保留更完整、更丰富、更容易长期维持的饮食结构。
近年来被讨论较多的地中海饮食,就是这种思路的代表之一。
地中海饮食:一种更丰富的长期饮食框架
地中海饮食强调摄入蔬菜、水果、全谷物、豆类、坚果、橄榄油、鱼类及其他优质蛋白,同时减少红肉、加工肉类和超加工食品。
这种饮食模式的特点不在某一种超级食物,而在整体组合:包含较丰富的膳食纤维、不饱和脂肪酸及植物来源的生物活性成分,也为肠道微生物提供了多种可利用的膳食底物。
编辑
在针对 IBD 研究过的包容性饮食模式中,当前各学会推荐地中海饮食作为大多数患者优选的饮食框架。
不过,支持性证据主要来自观察性研究,而随机对照试验数据仍然有限。
一些研究已经证明,坚持地中海饮食与克罗恩病和溃疡性结肠炎患者的疾病活动指数、炎症生物标志物和生活质量改善之间存在关联。
前文介绍的 DINE-CD 试验,也为这一方向提供了参考。在具有轻中度症状的成年克罗恩病患者中,地中海饮食与限制更严格的 SCD 在第6周取得了相近的症状缓解率,两组的炎症指标应答率也未见显著差异。
这项研究提示,长期饮食方案的选择可以同时考虑营养结构、食物丰富程度及患者的执行能力。对于病情稳定、没有特殊饮食禁忌的患者,地中海饮食提供了一种较容易融入日常生活的基础框架。
相关研究为包容性饮食提供了生物学依据,长期疾病获益仍有待更多临床试验进一步明确。
专业指南更加重视营养充分与长期可持续
近年来,专业组织相继更新 IBD 饮食管理建议,将营养状态、疾病活动度及患者的实际生活需求纳入饮食方案的选择。
各组织的关注重点有所不同,但整体上都强调营养充分、个体化管理,以及饮食干预与规范医学治疗相结合。
中华医学会消化病学分会
2026年,《中华医学会消化病学分会炎症性肠病学组》发布了《炎症性肠病生活方式管理中国专家共识》。
1、IBD患者普遍存在膳食纤维、维生素、矿物质及其他营养素摄入不足的问题,导致营养缺乏发生率较高。多种营养素缺乏与疾病活动度密切相关。患者应在医师指导下加强饮食管理并适时补充必需营养素。(共识水平:100.0%;证据质量:中等质量)
2、饮食或补充剂中增加膳食纤维对非狭窄型克罗恩病患者具有良好安全性,而合并症状性肠道狭窄的克罗恩病患者应严格限制膳食纤维的摄入。(共识水平:96.0%;证据质量:中等质量)
3、在充分保障患者每日营养需求的前提下,临床医师应结合IBD患者的肠道耐受情况,参考一般人群的健康膳食指南,对脂肪、蛋白质,以及特定种类的肉类、蔬菜和水果的摄入进行个体化调整,以实现营养均衡和症状控制的双重目标。
4、超加工食品的摄入可能增加IBD患者的疾病活动度和复发风险,并与手术等不良结局相关,建议患者在日常生活中减少此类食品的摄入。(共识水平:100.0%;证据质量:中等质量)
5、鉴于我国人群乳糖不耐受比例较高,建议对乳制品不耐受或回避的IBD患者增加其他来源的蛋白质和营养素摄入,以保证其营养需求。
6、不建议IBD患者在无明确依据的情况下减少米、面等精制谷物主食的摄入。如有调整饮食结构的需求,可在专业人士指导下适度增加全谷物的摄入。
7、以高摄入超加工食品、红肉和动物脂肪,以及低摄入蔬菜与水果为特征的西方化饮食与IBD患者的不良预后密切相关。在日常饮食管理中,患者可参考地中海饮食(高蔬菜水果、全谷物、豆类、鱼类及不饱和脂肪摄入,限制红肉和甜食摄入),含可被发酵的低聚糖、双糖、单糖和多聚糖的食物(fermentableoligosaccharides, dissaccharides,monosaccharides andpolyol;FODMAP)饮食,以及江南饮食等健康饮食模式进行食物选择。这些健康饮食模式的共同理念在于增加水果、蔬菜、全谷物、豆类、鱼类、坚果与种子类食物的摄入,同时限制红肉、加工肉类、高糖食品和饮料的摄入。(共识水平:92.0%;证据质量:高质量)
——以上内容引自:《中华医学会消化病学分会炎症性肠病学组》
国外权威指南也有相关描述:
美国胃肠病协会 (AGA)
2024年临床实践更新建议,在没有禁忌的情况下,多数 IBD 患者可以将地中海饮食作为长期健康饮食的基础。
对于症状明显的疾病活动期患者,可以短期采用低渣、低纤维饮食,并根据病情逐步恢复日常饮食。AGA 对长期严格限制性饮食持谨慎态度,包括长期维持低 FODMAP 饮食。
此外,减少红肉和加工肉类摄入可能有助于降低溃疡性结肠炎的发作风险,但在克罗恩病中尚未观察到同样明确的复发预防效果。
欧洲克罗恩病和结肠炎组织 (ECCO)
2025年饮食管理共识强调保障充足的营养摄入,避免缺乏明确适应证的长期限制。对于活动期或存在肠梗阻症状的患者,可以根据临床情况短期调整饮食。
ECCO 还建议尽早引入具备 IBD 管理经验的营养师,协助评估营养状态、制定个体化方案,并提高长期饮食管理的可执行性。
国际炎症性肠病研究组织 (IOIBD)
IOIBD承认,饮食干预可能在症状管理中发挥作用,或作为部分患者的辅助治疗,但不要将限制性饮食作为单一治疗方案。该组织特别强调在进行饮食干预时,要进行共同决策、密切监测营养缺乏症,并让多学科护理团队参与。
美国胃肠病学会 (ACG)
对克罗恩病和溃疡性结肠炎的相关建议也强调饮食的辅助作用。对于中重度活动性 IBD,疾病控制仍需要有效的药物治疗;部分轻症患者或有特定症状的患者,可以在专业指导下进行短期饮食调整,并获得相应的营养支持。
编辑
doi.org/10.1007/s11894-026-01047-0
综合这些建议,长期饮食管理更加重视营养充分、饮食多样性和患者的实际耐受情况。地中海饮食因其整体健康获益、食物选择相对丰富及长期可执行性,成为多数 IBD 患者可以考虑的基础饮食模式。
对于有明确临床需要的患者,针对性限制和治疗性饮食仍然具有相应的应用价值。
全肠内营养、克罗恩病排除饮食:限制可以有价值,但要有目标、有阶段
EEN:在克罗恩病中具有明确治疗地位,儿童证据尤其充分
全肠内营养(Exclusive Enteral Nutrition,EEN)在克罗恩病,尤其儿童克罗恩病中具有明确治疗地位。在规定疗程内,患者主要通过营养配方获得完整营养,以缓解疾病。
部分成年患者也可在专业指导下采用 EEN,具体应用需要结合疾病状态、营养情况及治疗目标。
CDED:“限制”也可以是结构化、阶段性的治疗
克罗恩病排除饮食(Crohn’s Disease Exclusion Diet,CDED)是一种分阶段实施的治疗性饮食,通常与部分肠内营养(Partial Enteral Nutrition,PEN)联合使用。
它并不是让患者无限期地排除越来越多食物,而是按照治疗目标规定不同阶段的饮食内容,并安排后续过渡。
2019年的一项随机对照试验纳入78名轻中度克罗恩病患儿。40人接受CDED联合PEN,38人接受EEN。CDED+PEN组的饮食耐受率达到97.5%,EEN组为73.6%,P=0.002。
第6周,采用更严格缓解标准时,两组无激素缓解率分别为75%和59%,差异没有达到统计学显著。
到了第12周,持续接受CDED+PEN的患者中75.6%维持无激素缓解,而EEN后转为自由饮食联合PEN的对照组为45.1%,P=0.01。
这类治疗性饮食有一个共同点:适应证、疗程和后续调整都比较明确,通常由医疗和营养专业人员共同管理。研究也强调,限制性饮食应有明确目标和时间边界,并安排结构化的食物重新引入。
限制要有开始,也要有退出机制。
这也给“动态扩容”划出了边界:病情需要时可以限制,条件改变后,就该重新评估那些曾经被停掉的食物。那么,什么时候可以加回来?吃完不舒服又该怎么看?
编辑
IBD 患者在不同疾病阶段的饮食需求存在明显差异。
同一种食物,对不同患者可能不同;对同一个患者,在活动期、缓解期、术后恢复期,答案也可能发生变化。有没有明显狭窄、一次吃多少、食物是生的还是充分煮熟、个人有没有乳糖或其他食物不耐受,都会影响实际反应。
因此,与其不断追问“这个东西到底能不能吃”,更有效的问题是:
以现在的疾病状态,这个食物是否适合?
如果需要暂缓,原因是什么?什么时候再评估?
吃完不舒服,需要重视,但不当成炎症复发
腹胀、腹痛、排便次数增多、大便变稀,当然都值得关注。但IBD中的胃肠道症状与炎症活动并不完全同步。
有些食物进入肠道以后,因为发酵、渗透作用、食物质地或对胃肠动力的影响,可以造成产气、腹胀和排便改变,这些症状并不意味着肠黏膜炎症必然同步加重。反过来,一个人几乎没有症状,也不能据此确认肠道中完全不存在炎症。
低FODMAP研究非常适合说明这个区别
低 FODMAP 饮食最初用于肠易激综合征,主要减少容易发酵、吸收不完全的短链碳水化合物。
它在 IBD 中最有价值的场景,通常是疾病处于缓解期,但患者仍然存在腹胀、腹痛、腹泻等 IBS 样症状。
编辑
2020 年一项随机对照试验纳入 52 名处于静止期、但仍有持续胃肠道症状的克罗恩病或溃疡性结肠炎患者。27 人接受低 FODMAP 饮食建议,25 人接受对照饮食建议,干预 4 周。低 FODMAP 组 14/27(52%)报告胃肠道症状得到充分缓解,对照组为 4/25(16%)(P=0.007)。
症状上的差异很明显,但研究并没有观察到相应的抗炎变化。粪便钙卫蛋白、CRP等指标没有出现一致改善。
2025年的Meta分析汇总5项随机对照试验、共224名患者,也发现低FODMAP可以降低整体IBS样症状严重程度,SMD=-0.56,95%CI -0.90~-0.23,P=0.0009;粪便钙卫蛋白则没有显著差异,SMD=-0.20,P=0.17,而且整体证据确定性仍然有限。
编辑
随机研究还观察到长期严格低FODMAP可能减少双歧杆菌和普拉梭菌,并影响丁酸生成。
因此,目前低FODMAP饮食更适合在有IBS样症状重叠的部分IBD患者中短期使用,随后进行结构化的食物再引入。
这组研究对普通患者有一个非常实际的意义:
有时候需要调整的是量,有时候是食物形态,有时候处理的是功能性症状;如果客观炎症指标同时升高,则又属于另外一个临床问题。
看现在处在哪个阶段,再决定要不要“扩”
开始重新引入食物以前,首先需要判断当前疾病状态。
活动性炎症、IBD与IBS样症状重叠、肠道狭窄以及术后恢复,对饮食的要求差异很大。评估时除了症状,还可以结合粪便钙卫蛋白、CRP,必要时通过内镜或肠道检查了解炎症和肠道结构。
如果炎症正在明显活动,治疗炎症本身仍然是疾病管理的核心,不能因为少吃几样东西以后腹泻减少,就认为疾病已经得到控制。
如果炎症处于稳定状态,却仍有明显腹胀、腹痛和排便异常,就可以考虑是否存在IBS样功能性症状,以及低FODMAP等短期干预是否适合。
如果存在明显肠道狭窄或梗阻风险,食物质地和纤维摄入又需要单独调整。即使从长期健康角度希望增加植物性食物,也不能脱离肠道结构情况自行大量增加粗纤维。
编辑
重新引入时,一次不要改变太多
当疾病稳定、营养状态允许、又没有明确禁忌时,可以逐步尝试一些过去停掉的食物。
如果一次恢复五六种食物,第二天出现腹胀,很难知道真正的影响因素在哪里。因此,更容易观察的方法是一次尽量改变一个主要变量,从相对小的量开始,再结合食物质地和烹调方式逐步调整。
例如,一种蔬菜过去生吃容易出现明显症状,可以根据个人情况先从充分煮熟、较小份量尝试;曾经长期不吃豆类,也无需第一顿就吃很大的量。
如存在明显狭窄、既往复杂手术或其他特殊情况时,重新增加膳食纤维尤其需要医生和营养专业人员参与。
这个过程不追求“挑战食物”。主要是看这项限制今天还需不需要存在?如果不需要,我怎样把它稳妥地放回日常饮食?
观察症状、炎症、营养和微生态
重新吃回一种食物时,最容易感知的是腹胀、腹痛、排便这些变化,这些都可以记录下来。
但如果要判断这次重新引入是否合适,还需要把观察范围放宽一些,时间拉长一点。看这种反应是否反复出现,以及经过一段时间后,炎症状态、营养状态等有没有一起变化。
比如,某种食物增加以后连续几次都出现类似的腹胀,可以进一步调整摄入量、烹调方式或食物形态;
如果只是偶尔一次不舒服,之后又能够正常耐受,就没有必要急着重新把它放回“黑名单”。
——看疾病状态
除了症状记录,也可以结合粪便钙卫蛋白、C反应蛋白等炎症相关指标;医生认为有必要时,再进一步考虑内镜或影像检查。这些临床评估仍是判断疾病活动度的重要依据。
如果希望进一步了解肠道微生态,也可以把粪便菌群检测作为补充观察工具。以谷禾健康肠道菌群检测为例,样本通过粪便采集,过程相对无创;报告可提供菌群组成,以及与炎症、肠道屏障等相关的参考指标和风险评估,为理解个体的微生态状况增加指导线索。
把这些信息放在一起,更容易判断这段时间出现的腹泻、腹痛,究竟是食物耐受变化,还是疾病状态也在悄悄发生改变。
——看营养和饮食结构
除了症状和炎症相关指标,体重、肌肉量,以及铁、维生素D、维生素B12等营养指标,也值得持续关注。它们能帮助判断:随着饮食限制减少,营养摄入是否更充足,整体饮食结构是否有所改善。
编辑
例如,一位长期不吃豆类、全谷物和多种蔬菜的患者,在病情稳定后逐步增加这些食物,观察的就不只是“吃完有没有腹胀”。还可以结合粪便钙卫蛋白、C反应蛋白等临床指标,关注炎症状态是否稳定。
同时评估膳食纤维摄入和相关营养指标的变化。如果希望进一步了解饮食调整伴随的微生态变化,也可以参考菌群多样性、短链脂肪酸相关评估及相关菌群等指标。
这些信息需要放在一起理解:饮食变化、症状、营养状态、近期用药和疾病活动度都可能影响肠道微生态。菌群检测可以补充一组个体化的微生态参考信息,帮助患者和医生观察饮食结构变化与菌群特征之间是否出现值得关注的趋势。
编辑
饮食调整开始时,可以先留下自己的基线菌群状态。几个月后再复测,与自己的基线做纵向比较,就能看到随着食物种类逐步增加,菌群多样性、核心菌群、IBD风险评估,以及膳食纤维、短链脂肪酸生成能力等指标在发生的变化,通过这样不断持续记录和对比,不仅能清晰地看到哪些饮食调整对自己的菌群产生了积极影响,更能发现哪些食物可能引发了肠道不适,从而灵活地进行针对性地调整。
编辑
对于炎症性肠病(IBD)患者,限制饮食有明确适用场景,例如确诊乳糜泻、食物过敏,或在专业指导下进行有期限、有目标的饮食干预。需要重新审视的,是那些长期沿用、依据不清,或已经让饮食种类越来越少、营养摄入和生活质量受到影响的限制。“可能不耐受”不等于必须终身忌口;但重新尝试,也应建立在病情和个人风险经过评估的基础上。
如果考虑重新引入某种食物,第一步不是直接试吃,而是先弄清楚限制它的原因:曾经出现的是过敏反应、稳定重复的胃肠道症状,还是在疾病发作期偶然出现的不适?目前疾病是否稳定?是否有肠道狭窄、梗阻风险、吞咽困难等会影响进食安全的情况?既往是否有严重过敏反应?同时也要盘点体重变化、实际摄入量,以及铁、维生素B12、维生素D等营养风险。
若有狭窄或梗阻风险、严重过敏史、明显营养不良或病情活动,不宜自行进行食物挑战。
有一个比较安全可以采用一个简单、可复盘的步骤:一次只调整一种食物,从少量、容易控制的形式开始;尽量保持其他饮食和用药不变;记录食物、份量、烹调方式、症状及发生时间。若相似反应在多次摄入后重复出现,再讨论是否需要改变份量或做法、暂缓尝试,或进一步评估。若只是偶发一次不适,不必立刻把食物永久列入禁忌(除一些诱发荨麻疹、呼吸困难、喉头肿胀等严重过敏反应的食物)。
判断结果时,也不要把所有症状都归因于食物。腹痛、腹泻可能与食物耐受、感染、药物或IBD活动等多种因素有关。若症状持续或加重,应由医生结合病程和具体表现,决定是否需要粪便钙卫蛋白、血液检查、内镜和肠道菌群评估;食物过敏评估则应基于相应的病史和临床怀疑,而不是仅凭不适就进行广泛筛查。与此同时,定期关注体重、肌肉量、饮食摄入和有指征的营养指标,避免在控制症状的过程中忽略营养不足和菌群的平衡以及多样性等。
注:本文仅用于IBD和营养相关知识分享,不替代针对个体患者的医疗和营养建议。IBD活动期、肠道狭窄、术后、儿童青少年及存在明显营养不良风险的人群,饮食调整尤其需要结合消化科医生及专业营养师进行个体化评估。
相关阅读:
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
炎症性肠病中宿主与微生物群的相互作用
“灭火指南”——通过早期营养干预改善慢性低度炎症
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
肠道病原体感染定植的三个关键角色——炎症、营养与共生菌群
肠道菌群失调与炎症性肠病的关联
全面解析各类营养物质在炎症中的作用
主要参考文献
向上滑动阅览
Cunha B, Alter A, Berschback M, Park S, Gold S, Schneider Y. Rethinking Restrictive Diets in IBD: Toward an Inclusion-Focused Nutritional Paradigm. Curr Gastroenterol Rep. 2026 Sep 19;28(1):31.
Hashash JG, Elkins J, Lewis JD, Binion DG. AGA Clinical Practice Update on Diet and Nutritional Therapies in Patients With Inflammatory Bowel Disease: Expert Review. Gastroenterology. 2024 Mar;166(3):521-532.
Tu W, Li Y, Yin T, Zhang S, Zhang P, Xu G. Association between avoidant/restrictive food intake disorder risk, dietary attitudes and behaviors among Chinese patients with inflammatory bowel disease: a cross-sectional study. BMC Gastroenterol. 2025 Mar 6;25(1):144.
Godny L, Pfeffer-Gik T, Elial-Fatal S, Shakhman S, Dotan I. Nutritional composition of diets for inducing and maintaining remission in inflammatory bowel diseases: from bedside to plate. Curr Opin Pharmacol. 2026 Feb;86:102587.
Ville A, McRae R, Nomchong J, Reidlinger DP, Davidson AR, Staudacher HM, Albarqouni L. Effects of a Low FODMAP Diet in Inflammatory Bowel Disease and Patient Experiences: A Mixed Methods Systematic Literature Review and Meta-Analysis. J Hum Nutr Diet. 2025 Aug;38(4):e70106.
Gregersen L, Moos C, Hikmat Z, Fogh Rasmussen N, Petersen SR, Heitmann BL, Halldórsson ÞI, Andersen V, Christensen R. Study Design Complexity and Participant Completion in Dietary Trials for Inflammatory Bowel Disease: A Systematic Review and Metaresearch Study. Adv Nutr. 2026 Apr;17(4):100614.