-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
一个炎症性肠病(IBD)患者,刚确诊时,医生告诉他要注意饮食,于是他可能会经历这样一个过程:
先是开始少吃辛辣、油炸食品。
后来听说乳制品可能刺激肠道,于是戒掉牛奶。又看到有人说麸质不好,面包也不吃了。
再后来是粗粮、豆类、生冷蔬菜、水果、坚果
……
每一次腹痛、腹胀或者腹泻,都可能让一种新的食物进入“黑名单”。
编辑
这种现象并不罕见。2018 年一项针对 294 名荷兰成年 IBD 患者的调查显示:
编辑
这类数据并不能代表所有 IBD 患者,但足以说明:对许多人来说,饮食是疾病管理中最容易主动掌控的一部分。
问题也由此出现:如果某种限制能让人感觉好一点,那么限制得更多、更彻底,会不会更安全?如果症状减少了,是不是说明肠道炎症也控制住了?
科学界正在重新审视这个逻辑。
本文系统梳理了特定碳水化合物饮食(SCD)、低FODMAP、无麸质、无乳制品…这些限制性饮食常被用于应对不同的健康困扰,但它们带来的匹配获益,是否足以抵偿长期坚持所付出的营养、微生态、心理和现实成本?
本文不预设限制性饮食应当被推崇或否定,而是尝试追问:对谁有益、依据有多充分,又要付出什么代价?当明确依据有限时,我们应如何判断一种饮食限制是否值得长期坚持?
编辑
限制性饮食之所以有吸引力,很大程度上来自一个符合直觉的推理:既然某些食物可能带来症状,把它们排除以后感觉舒服了一些,那么意味着排除得更加彻底,也许效果会更好。
特定碳水化合物饮食(specific carbohydrate diet,SCD)是一个典型例子。
特定碳水化合物饮食 vs. 地中海饮食——限制更多的一方,没有明显优势
特定碳水化合物饮食(specific carbohydrate diet,SCD)是 IBD 患者中较常见的限制性饮食之一。通常限制谷物、复杂碳水化合物、多数乳制品和加工食品。
早期一些病例和观察性研究报告过症状改善,但样本量、随访时间和对照质量都有限。
编辑
2021 年,发表于《Gastroenterology》的一项DINE-CD 的多中心随机对照试验,给了研究者一个很直接的比较机会:SCD与地中海饮食,谁对轻中度症状的成年克罗恩病患者更有帮助?
研究纳入有轻中度症状的成年克罗恩病患者,194 人被随机分配到 SCD 或地中海饮食组,191 人进入有效性分析。前6 周由研究方提供符合方案的餐食和零食,之后患者自行执行饮食。
第 6 周,两组差异没有统计学意义。结果如下:
编辑
也就是说,在这组轻中度症状的成年人中,限制明显更多的SCD,并没有因为“管得更严”而获得更好的症状缓解或炎症指标应答。
无麸质、无乳制品——有适应证时有价值,长期坚持缺少依据
无麸质和无乳制品饮食也需要区分适应证。
如果 IBD 患者同时存在乳糜泻——严格无麸质饮食当然是必要治疗;
如果明确有乳糖不耐受——减少乳糖摄入也可能明显改善腹胀、腹泻等症状。
到了没有这些适应证的IBD患者身上,证据就弱得多。
目前没有高质量随机对照试验证明,没有乳糜泻的IBD患者通过长期戒除麸质可以改善炎症结局。无麸质饮食还可能降低膳食纤维、叶酸、维生素B12、维生素D、铁和钙等营养素的摄入,同时增加饮食成本。
乳制品也有类似情况
两项规模较小的UC维持期研究共纳入77名患者,12个月时,无奶饮食组临床复发率为59%,对照组为68%,RR=0.83,95%CI 0.60~1.15,差异没有达到统计学显著;内镜和组织学复发的数据也不足以支持明确结论。
与此同时,长期排除乳制品还需要考虑钙和维生素D不足。
因此,对于长期忌口的患者,可以定期问问自己:这项限制当初为什么开始,今天还需要吗?
当严格程度增加,却没有获得与之相匹配的疾病获益,长期越来越窄的饮食范围,会不会同时付出其他代价?
编辑
限制性饮食当然有它的临床位置。疾病活动期、存在梗阻风险、明确食物不耐受,饮食调整本身可以是治疗和症状管理的一部分。
需要权衡的是,当一种长期限制没有显示出与其严格程度相匹配的疾病获益时,那么营养、心理、微生态、成本和可执行性代价就应被重视。
营养代价 | 过度忌口,加重营养风险
IBD 患者本身就容易出现营养问题。慢性炎症、食欲下降、腹泻和吸收障碍,都可能影响营养摄入和吸收,药物及既往手术也可能增加这一风险。
如果此时又长期排除多个食物类别,问题就容易叠加。长期忌口、食物种类不断减少,则可能进一步造成能量和蛋白质摄入不足,铁、维生素 B12、叶酸、维生素 D、锌和钙等营养素缺乏的风险增加。
看似正常的体重,也可能出现营养问题
即使体重没有明显下降,患者仍可能出现肌肉量减少,甚至发展为肌少症。研究指出,IBD 患者的肌少症与住院、术后并发症、生物制剂治疗反应较差及生活质量下降有关。
编辑
对于儿童和青少年,具有更高的营养需求,营养不足还可能影响生长发育、青春期发育延迟、骨矿化不足等。
因此,饮食管理里不是说只盯着“这顿饭有没有让我拉肚子”,也要看长期能量、蛋白质和微量营养素有没有跟上。
AGA 2024年临床实践更新提出,IBD患者需要定期接受营养不良筛查,并关注维生素D和铁;对于广泛回肠病变或既往回肠手术患者,还应特别关注维生素B12。
微生态代价 | 过度忌口,可能改变肠道菌群
长期限制还有一个容易被忽视的矛盾:很多人减少食物种类,是为了保护肠道,但肠道微生物同样依赖我们每天吃进去的食物。全谷物、豆类、蔬菜、水果中的多种膳食纤维和可发酵成分,可被肠道微生物利用,并生成包括乙酸、丙酸、丁酸在内的短链脂肪酸。丁酸被认为参与肠上皮屏障完整性和免疫调节。
研究指出,饮食多样性与肠道微生物群的多样性和韧性有关;长期减少可发酵纤维,可能伴随部分有益菌减少和短链脂肪酸生成下降。
因此,食物越来越单一带来的变化,可能不只表现为少摄入了几种维生素。长期饮食结构怎样改变肠道生态,也逐渐成为IBD营养研究的重要方向。
心理代价 | 焦虑:从谨慎进食到害怕吃饭
当食物不断被分成安全和危险,正常进食很容易变成持续的风险评估。
今天腹痛,就开始回想中午是不是吃错了什么;
明天排便次数增加,又从菜单里删掉一样。
随着这种模式不断重复,可选择的食物越来越少,
即使疾病已经稳定,患者也可能仍然不敢尝试过去停掉的食物。
这种模式在部分患者中会发展为明显的食物焦虑,甚至达到回避/限制性食物摄入障碍(avoidant/restrictive food intake disorder,ARFID)的标准。
注:回避/限制性食物摄入障碍是一种进食障碍。患者可能因为害怕进食后的不良反应、对食物的气味或质地敏感,或者缺乏进食兴趣,长期回避某些食物或限制摄入量,进而出现营养不足、体重下降或社交功能受损。与神经性厌食症不同,ARFID 通常与追求瘦身或对体重、体形的不满无关。
2025 年一项多中心研究纳入 325 名 IBD 患者,17.8% 符合 ARFID 标准;
即便只看没有客观活动性炎症的患者,仍有 16.3% 符合标准。
对于这部分疾病处于非活动状态的患者,胃肠道相关焦虑是显著预测因素。
一项包括国内四家三甲医院的消化内科门诊进行的横断面研究,共有 483 名患有炎症性肠病的患者完成了问卷调查。其中,20.3%的患者符合急性回避障碍的临床标准。急性回避障碍的平均得分为 21.9 分。
编辑
多变量逻辑回归分析结果显示,以下因素与急性回避障碍的发生有显著关联:患有克罗恩病的患者(比值比为 0.483,95%置信区间:0.280-0.835;p=0.009);处于活动性疾病状态的患者(比值比为 0.220,95%置信区间:0.123-0.392;p<0.001);具有与症状控制相关的饮食观念的患者(比值比为 2.431,95%置信区间:1.299-4.548;p=0.005);以及有特定饮食史的患者(比值比为 27.158,95%置信区间:3.679-200.456;p=0.001)。
回避/限制性食物摄入障碍(ARFID)不是以减重为目的的节食
患者可能因为害怕腹痛、腹泻等进食后果,对食物气味或质地敏感,或者逐渐缺乏进食兴趣,持续回避食物或限制摄入,最后影响营养、体重和社会功能。
当限制不断扩大、即使病情稳定也不敢重新引入食物时,饮食管理已经不仅是营养问题,也可能成为心理和生活质量问题。
执行代价 | 方案越复杂,现实中的坚持越困难
严格饮食还会带来很实际的负担:购买特殊食材、阅读配料表、自己准备餐食、减少外食、额外使用营养补充剂,以及更多的时间和经济成本。
临床试验中的退出率,可以部分反映这种负担。
提供预制餐 V.S. 自行备餐
提供预制餐:2026年一项对62项IBD饮食试验、共3523名参与者进行的Meta研究显示,总体未完成率约为16%。
自行备餐:其中最显著的例子是 PRODUCE 试验,在该试验中,特定碳水化合物饮食组44%的参与者退出。
编辑
研究者还注意到,由研究团队直接提供餐食的试验,完成情况往往好于需要参与者自行采购和准备食物的试验。换句话说,进入真实生活以后,复杂饮食的执行难度可能还会进一步增加。
当这些问题被放到一起,IBD长期饮食管理的方向也开始发生变化。
编辑
如果长期饮食限制既没有稳定显示出更好的疾病控制,又可能伴随营养、微生态、心理和执行方面的成本,那么研究自然会开始寻找另一种路径:在疾病条件允许的情况下,尽量保留更完整、更丰富、更容易长期维持的饮食结构。
近年来被讨论较多的地中海饮食,就是这种思路的代表之一。
地中海饮食:一种更丰富的长期饮食框架
地中海饮食强调摄入蔬菜、水果、全谷物、豆类、坚果、橄榄油、鱼类及其他优质蛋白,同时减少红肉、加工肉类和超加工食品。
这种饮食模式的特点不在某一种超级食物,而在整体组合:包含较丰富的膳食纤维、不饱和脂肪酸及植物来源的生物活性成分,也为肠道微生物提供了多种可利用的膳食底物。
编辑
在针对 IBD 研究过的包容性饮食模式中,当前各学会推荐地中海饮食作为大多数患者优选的饮食框架。
不过,支持性证据主要来自观察性研究,而随机对照试验数据仍然有限。
一些研究已经证明,坚持地中海饮食与克罗恩病和溃疡性结肠炎患者的疾病活动指数、炎症生物标志物和生活质量改善之间存在关联。
前文介绍的 DINE-CD 试验,也为这一方向提供了参考。在具有轻中度症状的成年克罗恩病患者中,地中海饮食与限制更严格的 SCD 在第6周取得了相近的症状缓解率,两组的炎症指标应答率也未见显著差异。
这项研究提示,长期饮食方案的选择可以同时考虑营养结构、食物丰富程度及患者的执行能力。对于病情稳定、没有特殊饮食禁忌的患者,地中海饮食提供了一种较容易融入日常生活的基础框架。
相关研究为包容性饮食提供了生物学依据,长期疾病获益仍有待更多临床试验进一步明确。
专业指南更加重视营养充分与长期可持续
近年来,专业组织相继更新 IBD 饮食管理建议,将营养状态、疾病活动度及患者的实际生活需求纳入饮食方案的选择。
各组织的关注重点有所不同,但整体上都强调营养充分、个体化管理,以及饮食干预与规范医学治疗相结合。
中华医学会消化病学分会
2026年,《中华医学会消化病学分会炎症性肠病学组》发布了《炎症性肠病生活方式管理中国专家共识》。
1、IBD患者普遍存在膳食纤维、维生素、矿物质及其他营养素摄入不足的问题,导致营养缺乏发生率较高。多种营养素缺乏与疾病活动度密切相关。患者应在医师指导下加强饮食管理并适时补充必需营养素。(共识水平:100.0%;证据质量:中等质量)
2、饮食或补充剂中增加膳食纤维对非狭窄型克罗恩病患者具有良好安全性,而合并症状性肠道狭窄的克罗恩病患者应严格限制膳食纤维的摄入。(共识水平:96.0%;证据质量:中等质量)
3、在充分保障患者每日营养需求的前提下,临床医师应结合IBD患者的肠道耐受情况,参考一般人群的健康膳食指南,对脂肪、蛋白质,以及特定种类的肉类、蔬菜和水果的摄入进行个体化调整,以实现营养均衡和症状控制的双重目标。
4、超加工食品的摄入可能增加IBD患者的疾病活动度和复发风险,并与手术等不良结局相关,建议患者在日常生活中减少此类食品的摄入。(共识水平:100.0%;证据质量:中等质量)
5、鉴于我国人群乳糖不耐受比例较高,建议对乳制品不耐受或回避的IBD患者增加其他来源的蛋白质和营养素摄入,以保证其营养需求。
6、不建议IBD患者在无明确依据的情况下减少米、面等精制谷物主食的摄入。如有调整饮食结构的需求,可在专业人士指导下适度增加全谷物的摄入。
7、以高摄入超加工食品、红肉和动物脂肪,以及低摄入蔬菜与水果为特征的西方化饮食与IBD患者的不良预后密切相关。在日常饮食管理中,患者可参考地中海饮食(高蔬菜水果、全谷物、豆类、鱼类及不饱和脂肪摄入,限制红肉和甜食摄入),含可被发酵的低聚糖、双糖、单糖和多聚糖的食物(fermentableoligosaccharides, dissaccharides,monosaccharides andpolyol;FODMAP)饮食,以及江南饮食等健康饮食模式进行食物选择。这些健康饮食模式的共同理念在于增加水果、蔬菜、全谷物、豆类、鱼类、坚果与种子类食物的摄入,同时限制红肉、加工肉类、高糖食品和饮料的摄入。(共识水平:92.0%;证据质量:高质量)
——以上内容引自:《中华医学会消化病学分会炎症性肠病学组》
国外权威指南也有相关描述:
美国胃肠病协会 (AGA)
2024年临床实践更新建议,在没有禁忌的情况下,多数 IBD 患者可以将地中海饮食作为长期健康饮食的基础。
对于症状明显的疾病活动期患者,可以短期采用低渣、低纤维饮食,并根据病情逐步恢复日常饮食。AGA 对长期严格限制性饮食持谨慎态度,包括长期维持低 FODMAP 饮食。
此外,减少红肉和加工肉类摄入可能有助于降低溃疡性结肠炎的发作风险,但在克罗恩病中尚未观察到同样明确的复发预防效果。
欧洲克罗恩病和结肠炎组织 (ECCO)
2025年饮食管理共识强调保障充足的营养摄入,避免缺乏明确适应证的长期限制。对于活动期或存在肠梗阻症状的患者,可以根据临床情况短期调整饮食。
ECCO 还建议尽早引入具备 IBD 管理经验的营养师,协助评估营养状态、制定个体化方案,并提高长期饮食管理的可执行性。
国际炎症性肠病研究组织 (IOIBD)
IOIBD承认,饮食干预可能在症状管理中发挥作用,或作为部分患者的辅助治疗,但不要将限制性饮食作为单一治疗方案。该组织特别强调在进行饮食干预时,要进行共同决策、密切监测营养缺乏症,并让多学科护理团队参与。
美国胃肠病学会 (ACG)
对克罗恩病和溃疡性结肠炎的相关建议也强调饮食的辅助作用。对于中重度活动性 IBD,疾病控制仍需要有效的药物治疗;部分轻症患者或有特定症状的患者,可以在专业指导下进行短期饮食调整,并获得相应的营养支持。
编辑
doi.org/10.1007/s11894-026-01047-0
综合这些建议,长期饮食管理更加重视营养充分、饮食多样性和患者的实际耐受情况。地中海饮食因其整体健康获益、食物选择相对丰富及长期可执行性,成为多数 IBD 患者可以考虑的基础饮食模式。
对于有明确临床需要的患者,针对性限制和治疗性饮食仍然具有相应的应用价值。
全肠内营养、克罗恩病排除饮食:限制可以有价值,但要有目标、有阶段
EEN:在克罗恩病中具有明确治疗地位,儿童证据尤其充分
全肠内营养(Exclusive Enteral Nutrition,EEN)在克罗恩病,尤其儿童克罗恩病中具有明确治疗地位。在规定疗程内,患者主要通过营养配方获得完整营养,以缓解疾病。
部分成年患者也可在专业指导下采用 EEN,具体应用需要结合疾病状态、营养情况及治疗目标。
CDED:“限制”也可以是结构化、阶段性的治疗
克罗恩病排除饮食(Crohn’s Disease Exclusion Diet,CDED)是一种分阶段实施的治疗性饮食,通常与部分肠内营养(Partial Enteral Nutrition,PEN)联合使用。
它并不是让患者无限期地排除越来越多食物,而是按照治疗目标规定不同阶段的饮食内容,并安排后续过渡。
2019年的一项随机对照试验纳入78名轻中度克罗恩病患儿。40人接受CDED联合PEN,38人接受EEN。CDED+PEN组的饮食耐受率达到97.5%,EEN组为73.6%,P=0.002。
第6周,采用更严格缓解标准时,两组无激素缓解率分别为75%和59%,差异没有达到统计学显著。
到了第12周,持续接受CDED+PEN的患者中75.6%维持无激素缓解,而EEN后转为自由饮食联合PEN的对照组为45.1%,P=0.01。
这类治疗性饮食有一个共同点:适应证、疗程和后续调整都比较明确,通常由医疗和营养专业人员共同管理。研究也强调,限制性饮食应有明确目标和时间边界,并安排结构化的食物重新引入。
限制要有开始,也要有退出机制。
这也给“动态扩容”划出了边界:病情需要时可以限制,条件改变后,就该重新评估那些曾经被停掉的食物。那么,什么时候可以加回来?吃完不舒服又该怎么看?
编辑
IBD 患者在不同疾病阶段的饮食需求存在明显差异。
同一种食物,对不同患者可能不同;对同一个患者,在活动期、缓解期、术后恢复期,答案也可能发生变化。有没有明显狭窄、一次吃多少、食物是生的还是充分煮熟、个人有没有乳糖或其他食物不耐受,都会影响实际反应。
因此,与其不断追问“这个东西到底能不能吃”,更有效的问题是:
以现在的疾病状态,这个食物是否适合?
如果需要暂缓,原因是什么?什么时候再评估?
吃完不舒服,需要重视,但不当成炎症复发
腹胀、腹痛、排便次数增多、大便变稀,当然都值得关注。但IBD中的胃肠道症状与炎症活动并不完全同步。
有些食物进入肠道以后,因为发酵、渗透作用、食物质地或对胃肠动力的影响,可以造成产气、腹胀和排便改变,这些症状并不意味着肠黏膜炎症必然同步加重。反过来,一个人几乎没有症状,也不能据此确认肠道中完全不存在炎症。
低FODMAP研究非常适合说明这个区别
低 FODMAP 饮食最初用于肠易激综合征,主要减少容易发酵、吸收不完全的短链碳水化合物。
它在 IBD 中最有价值的场景,通常是疾病处于缓解期,但患者仍然存在腹胀、腹痛、腹泻等 IBS 样症状。
编辑
2020 年一项随机对照试验纳入 52 名处于静止期、但仍有持续胃肠道症状的克罗恩病或溃疡性结肠炎患者。27 人接受低 FODMAP 饮食建议,25 人接受对照饮食建议,干预 4 周。低 FODMAP 组 14/27(52%)报告胃肠道症状得到充分缓解,对照组为 4/25(16%)(P=0.007)。
症状上的差异很明显,但研究并没有观察到相应的抗炎变化。粪便钙卫蛋白、CRP等指标没有出现一致改善。
2025年的Meta分析汇总5项随机对照试验、共224名患者,也发现低FODMAP可以降低整体IBS样症状严重程度,SMD=-0.56,95%CI -0.90~-0.23,P=0.0009;粪便钙卫蛋白则没有显著差异,SMD=-0.20,P=0.17,而且整体证据确定性仍然有限。
编辑
随机研究还观察到长期严格低FODMAP可能减少双歧杆菌和普拉梭菌,并影响丁酸生成。
因此,目前低FODMAP饮食更适合在有IBS样症状重叠的部分IBD患者中短期使用,随后进行结构化的食物再引入。
这组研究对普通患者有一个非常实际的意义:
有时候需要调整的是量,有时候是食物形态,有时候处理的是功能性症状;如果客观炎症指标同时升高,则又属于另外一个临床问题。
看现在处在哪个阶段,再决定要不要“扩”
开始重新引入食物以前,首先需要判断当前疾病状态。
活动性炎症、IBD与IBS样症状重叠、肠道狭窄以及术后恢复,对饮食的要求差异很大。评估时除了症状,还可以结合粪便钙卫蛋白、CRP,必要时通过内镜或肠道检查了解炎症和肠道结构。
如果炎症正在明显活动,治疗炎症本身仍然是疾病管理的核心,不能因为少吃几样东西以后腹泻减少,就认为疾病已经得到控制。
如果炎症处于稳定状态,却仍有明显腹胀、腹痛和排便异常,就可以考虑是否存在IBS样功能性症状,以及低FODMAP等短期干预是否适合。
如果存在明显肠道狭窄或梗阻风险,食物质地和纤维摄入又需要单独调整。即使从长期健康角度希望增加植物性食物,也不能脱离肠道结构情况自行大量增加粗纤维。
编辑
重新引入时,一次不要改变太多
当疾病稳定、营养状态允许、又没有明确禁忌时,可以逐步尝试一些过去停掉的食物。
如果一次恢复五六种食物,第二天出现腹胀,很难知道真正的影响因素在哪里。因此,更容易观察的方法是一次尽量改变一个主要变量,从相对小的量开始,再结合食物质地和烹调方式逐步调整。
例如,一种蔬菜过去生吃容易出现明显症状,可以根据个人情况先从充分煮熟、较小份量尝试;曾经长期不吃豆类,也无需第一顿就吃很大的量。
如存在明显狭窄、既往复杂手术或其他特殊情况时,重新增加膳食纤维尤其需要医生和营养专业人员参与。
这个过程不追求“挑战食物”。主要是看这项限制今天还需不需要存在?如果不需要,我怎样把它稳妥地放回日常饮食?
观察症状、炎症、营养和微生态
重新吃回一种食物时,最容易感知的是腹胀、腹痛、排便这些变化,这些都可以记录下来。
但如果要判断这次重新引入是否合适,还需要把观察范围放宽一些,时间拉长一点。看这种反应是否反复出现,以及经过一段时间后,炎症状态、营养状态等有没有一起变化。
比如,某种食物增加以后连续几次都出现类似的腹胀,可以进一步调整摄入量、烹调方式或食物形态;
如果只是偶尔一次不舒服,之后又能够正常耐受,就没有必要急着重新把它放回“黑名单”。
——看疾病状态
除了症状记录,也可以结合粪便钙卫蛋白、C反应蛋白等炎症相关指标;医生认为有必要时,再进一步考虑内镜或影像检查。这些临床评估仍是判断疾病活动度的重要依据。
如果希望进一步了解肠道微生态,也可以把粪便菌群检测作为补充观察工具。以谷禾健康肠道菌群检测为例,样本通过粪便采集,过程相对无创;报告可提供菌群组成,以及与炎症、肠道屏障等相关的参考指标和风险评估,为理解个体的微生态状况增加指导线索。
把这些信息放在一起,更容易判断这段时间出现的腹泻、腹痛,究竟是食物耐受变化,还是疾病状态也在悄悄发生改变。
——看营养和饮食结构
除了症状和炎症相关指标,体重、肌肉量,以及铁、维生素D、维生素B12等营养指标,也值得持续关注。它们能帮助判断:随着饮食限制减少,营养摄入是否更充足,整体饮食结构是否有所改善。
编辑
例如,一位长期不吃豆类、全谷物和多种蔬菜的患者,在病情稳定后逐步增加这些食物,观察的就不只是“吃完有没有腹胀”。还可以结合粪便钙卫蛋白、C反应蛋白等临床指标,关注炎症状态是否稳定。
同时评估膳食纤维摄入和相关营养指标的变化。如果希望进一步了解饮食调整伴随的微生态变化,也可以参考菌群多样性、短链脂肪酸相关评估及相关菌群等指标。
这些信息需要放在一起理解:饮食变化、症状、营养状态、近期用药和疾病活动度都可能影响肠道微生态。菌群检测可以补充一组个体化的微生态参考信息,帮助患者和医生观察饮食结构变化与菌群特征之间是否出现值得关注的趋势。
编辑
饮食调整开始时,可以先留下自己的基线菌群状态。几个月后再复测,与自己的基线做纵向比较,就能看到随着食物种类逐步增加,菌群多样性、核心菌群、IBD风险评估,以及膳食纤维、短链脂肪酸生成能力等指标在发生的变化,通过这样不断持续记录和对比,不仅能清晰地看到哪些饮食调整对自己的菌群产生了积极影响,更能发现哪些食物可能引发了肠道不适,从而灵活地进行针对性地调整。
编辑
对于炎症性肠病(IBD)患者,限制饮食有明确适用场景,例如确诊乳糜泻、食物过敏,或在专业指导下进行有期限、有目标的饮食干预。需要重新审视的,是那些长期沿用、依据不清,或已经让饮食种类越来越少、营养摄入和生活质量受到影响的限制。“可能不耐受”不等于必须终身忌口;但重新尝试,也应建立在病情和个人风险经过评估的基础上。
如果考虑重新引入某种食物,第一步不是直接试吃,而是先弄清楚限制它的原因:曾经出现的是过敏反应、稳定重复的胃肠道症状,还是在疾病发作期偶然出现的不适?目前疾病是否稳定?是否有肠道狭窄、梗阻风险、吞咽困难等会影响进食安全的情况?既往是否有严重过敏反应?同时也要盘点体重变化、实际摄入量,以及铁、维生素B12、维生素D等营养风险。
若有狭窄或梗阻风险、严重过敏史、明显营养不良或病情活动,不宜自行进行食物挑战。
有一个比较安全可以采用一个简单、可复盘的步骤:一次只调整一种食物,从少量、容易控制的形式开始;尽量保持其他饮食和用药不变;记录食物、份量、烹调方式、症状及发生时间。若相似反应在多次摄入后重复出现,再讨论是否需要改变份量或做法、暂缓尝试,或进一步评估。若只是偶发一次不适,不必立刻把食物永久列入禁忌(除一些诱发荨麻疹、呼吸困难、喉头肿胀等严重过敏反应的食物)。
判断结果时,也不要把所有症状都归因于食物。腹痛、腹泻可能与食物耐受、感染、药物或IBD活动等多种因素有关。若症状持续或加重,应由医生结合病程和具体表现,决定是否需要粪便钙卫蛋白、血液检查、内镜和肠道菌群评估;食物过敏评估则应基于相应的病史和临床怀疑,而不是仅凭不适就进行广泛筛查。与此同时,定期关注体重、肌肉量、饮食摄入和有指征的营养指标,避免在控制症状的过程中忽略营养不足和菌群的平衡以及多样性等。
注:本文仅用于IBD和营养相关知识分享,不替代针对个体患者的医疗和营养建议。IBD活动期、肠道狭窄、术后、儿童青少年及存在明显营养不良风险的人群,饮食调整尤其需要结合消化科医生及专业营养师进行个体化评估。
相关阅读:
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
炎症性肠病中宿主与微生物群的相互作用
“灭火指南”——通过早期营养干预改善慢性低度炎症
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
肠道病原体感染定植的三个关键角色——炎症、营养与共生菌群
肠道菌群失调与炎症性肠病的关联
全面解析各类营养物质在炎症中的作用
主要参考文献
向上滑动阅览
Cunha B, Alter A, Berschback M, Park S, Gold S, Schneider Y. Rethinking Restrictive Diets in IBD: Toward an Inclusion-Focused Nutritional Paradigm. Curr Gastroenterol Rep. 2026 Sep 19;28(1):31.
Hashash JG, Elkins J, Lewis JD, Binion DG. AGA Clinical Practice Update on Diet and Nutritional Therapies in Patients With Inflammatory Bowel Disease: Expert Review. Gastroenterology. 2024 Mar;166(3):521-532.
Tu W, Li Y, Yin T, Zhang S, Zhang P, Xu G. Association between avoidant/restrictive food intake disorder risk, dietary attitudes and behaviors among Chinese patients with inflammatory bowel disease: a cross-sectional study. BMC Gastroenterol. 2025 Mar 6;25(1):144.
Godny L, Pfeffer-Gik T, Elial-Fatal S, Shakhman S, Dotan I. Nutritional composition of diets for inducing and maintaining remission in inflammatory bowel diseases: from bedside to plate. Curr Opin Pharmacol. 2026 Feb;86:102587.
Ville A, McRae R, Nomchong J, Reidlinger DP, Davidson AR, Staudacher HM, Albarqouni L. Effects of a Low FODMAP Diet in Inflammatory Bowel Disease and Patient Experiences: A Mixed Methods Systematic Literature Review and Meta-Analysis. J Hum Nutr Diet. 2025 Aug;38(4):e70106.
Gregersen L, Moos C, Hikmat Z, Fogh Rasmussen N, Petersen SR, Heitmann BL, Halldórsson ÞI, Andersen V, Christensen R. Study Design Complexity and Participant Completion in Dietary Trials for Inflammatory Bowel Disease: A Systematic Review and Metaresearch Study. Adv Nutr. 2026 Apr;17(4):100614.
谷禾健康
一个班里,戴眼镜的孩子越来越多;一些孩子虽然已经配了眼镜,近视度数仍然一年比一年增长。如今,近视已经成了许多儿童和青少年绕不开的问题。
对不少家长来说,视力检查单上的数字,几乎成了每个学期都要面对的一份成绩单。很多家长认为,孩子看书离得太近、写作业时间太长、电子屏幕看得太多、户外活动太少、遗传等。
这些因素当然都很重要。
但在现实中,同样是长时间学习和看屏幕,有些孩子近视出现得早、进展得快,有些孩子却相对稳定。除了用眼习惯和遗传,是不是还有其他因素影响着视力的进展?
研究表明,多数儿童近视不断加深,眼球前后径逐渐增加,也就是眼轴延长。眼轴变长并不是眼球被简单地撑大,而是涉及视网膜接收视觉信号、脉络膜血流变化、巩膜胶原降解与重建等一系列生物学过程。
也就是说,近视虽然发生在眼睛里,却不一定只由眼睛局部决定。炎症水平、营养和能量代谢、神经递质、心理压力以及血管状态,都可能改变视网膜、脉络膜和巩膜所处的内部环境。
既然眼轴增长可能受到这些全身信号调节,研究者便进一步追问:在眼睛之外,是否还存在某些上游因素,能够通过免疫、代谢或神经通路,影响眼球的生长?
一个看似离眼睛很远的地方——肠道菌群,开始进入研究者的视线。
看过谷禾文章的朋友都知道,肠道菌群能够通过血液循环、免疫信号、神经通路等,与大脑、皮肤、肺等远处器官发生联系。由此,研究者提出了“肠-眼轴”的概念。
人群研究发现,近视与非近视之间,可能存在某些肠道菌群组成和功能上的差异;队列观察到婴幼儿时期的抗生素暴露,可能与之后的近视风险存在轻度关联;动物实验则开始将肠道菌群及其代谢物、肠道屏障与眼轴增长、视网膜炎症及巩膜胶原联系起来。
本文带大家从另一个角度来了解儿童近视。梳理近视相关的菌群差异、抗生素暴露和动物实验,分析肠道屏障、炎症、微生物代谢物及神经信号可能怎样影响眼球生长。在此基础上,文章还将重点介绍目前围绕“肠-眼轴”开展的干预研究,包括饮食、益生菌、营养补充剂以及运动、睡眠和压力管理等。
看不清远处,只是近视表现出来的结果,在不少近视儿童的眼睛里,眼球正在悄悄发生结构变化——眼轴逐渐变长了。
编辑
大多数儿童和青少年最常见的变化就是,眼球前后径增长,也就是眼轴变长。
随着眼球被逐渐拉长,位于眼球后部的视网膜、脉络膜和巩膜也会受到影响。其中,包裹眼球的巩膜可能出现胶原减少、组织变薄和支撑力下降,使眼球更容易继续延长。
眼镜可以帮助光线重新聚焦,让孩子看清楚,却不能直接把已经增长的眼轴缩回去。尤其是近视发生得越早,留给眼轴继续生长的时间越长,发展为高度近视的风险也可能越高。
眼轴为什么会不断增长?
过去,人们更多从遗传、近距离用眼和户外光照等方面寻找原因。现在研究者逐渐发现,眼轴生长的背后,还涉及视网膜信号、脉络膜血流、神经递质、免疫炎症以及巩膜组织重塑等一系列生物学过程。
编辑
眼轴延长虽然发生在眼球内部,但参与这一过程的信号并不完全局限于眼睛。脉络膜血流和巩膜缺氧、视网膜多巴胺、炎症因子以及胶原代谢,都可能受到全身免疫和代谢状态影响。
这意味着,近视研究不能只观察眼球局部,还需要寻找可能影响这些通路的上游因素。
为什么研究者开始关注肠道菌群?
肠道菌群恰好能够参与炎症调节、神经递质前体代谢以及血管和能量代谢,因此,研究者提出了“肠-眼轴”这一概念。
儿童阶段尤其值得关注。
菌群发育和眼球生长发生在相近的生命阶段,研究者开始提出:肠道微生态的变化,会不会影响儿童眼睛的生长环境?
这种肠道与眼睛之间可能存在的联系,被称为“肠-眼轴”。目前研究认为,它可能涉及免疫炎症、微生物代谢物、肠道屏障和神经信号等多个方面。
近视和非近视的肠道菌群差异
一些人群研究观察到,近视儿童和非近视儿童的肠道菌群存在差异。
一项纳入80名6~15岁青少年的16S rRNA测序研究发现,近视组的菌群丰富度及β多样性与非近视组存在差异。具体而言,近视组拟杆菌门和变形菌门丰度升高,厚壁菌门丰度降低;在属水平上,Prevotella_9、Megamonas的相对丰度增加,而Blautia、Faecalibacterium、Bifidobacterium、Roseburia等菌属相对减少。
另一项纳入102名6~18岁青少年的研究发现,近视组肠道菌群丰富度总体降低,而且这种差异主要集中在男性。
与非近视男性相比,近视男性的Akkermansia、Alistipes、Oscillibacter、Oscillospira等菌属减少,而Veillonella、Sutterella增加。
女性中的菌群差异相对较少,主要表现为Paraprevotella减少和Erysipelotrichaceae_UCG-003增加。
婴幼儿期使用抗生素,后来近视风险略升高
抗生素在治疗细菌感染的同时,也可能影响肠道中的正常微生物。尤其是在婴幼儿时期,肠道菌群尚处于建立和成熟阶段,抗生素带来的影响可能持续一段时间。
2026年发表的一项队列研究,分析了3岁及以前接受全身抗生素治疗的儿童,并将他们与未接受抗生素治疗的儿童进行比较。
抗生素暴露组和未暴露组各有158582名儿童,总样本量达到317164人,平均随访时间约为7.4年。
随访期间,抗生素暴露组共有75302人被诊断为近视,未暴露组为72806人。
在进一步校正年龄、性别、城市化程度、收入和相关疾病后,研究发现,3岁前使用过抗生素的儿童,后来发生近视的相对风险约增加3%,校正风险比为1.03。
注:校正风险比1.03,表示抗生素暴露组的相对风险约增加3%,并不等于一个孩子使用抗生素后,近视概率就直接增加3个百分点。而且,这项研究纳入了超过31万人。样本量非常大时,即使两组之间的实际差异较小,也可能达到统计学显著。
男孩和女孩中都观察到了类似结果:女孩的校正风险比约为1.05,男孩约为1.04。研究绘制的累积发病曲线也显示,随着随访时间延长,抗生素暴露组的近视累积发生率略高于未暴露组。
两组儿童的近视累积发生曲线
编辑
DOI: 10.37796/2211-8039.1666
使用时间越长,风险就越高吗?
研究者还根据抗生素累计使用时间进行了分析,与没有抗生素暴露的儿童相比:
不同使用时间分组中的近视风险均有所升高,但并没有出现非常清晰的“使用时间越长,风险越高”的递增关系。
总的来说,这项研究提供了一条人群层面的线索:婴幼儿期抗生素暴露与之后的近视风险存在轻度关联。随着相关研究不断增加,科学家开始进一步追问:肠道微生态的变化,究竟可能通过哪些途径影响眼球发育?
这就要从肠道菌群产生的代谢物、免疫信号和神经调节说起。
目前来看,肠-眼轴可能主要通过以下几条路径发挥作用。
肠道屏障受损,炎症信号可能进入全身
肠道上皮细胞、细胞之间的紧密连接、黏液层和正常菌群,共同构成一道屏障,防止大量细菌成分进入血液。
当菌群明显失衡时,肠道屏障也可能受到影响。一些细菌成分和炎症信号更容易进入循环,引发持续、低水平的全身炎症。
这种炎症不一定会让孩子发热或明显不舒服,却可能影响远处组织,包括眼睛。
2026年一项高近视小鼠研究发现,高近视小鼠不仅出现了巩膜变薄、胶原减少,同时还存在肠道菌群失衡和肠道屏障损伤。
研究者抑制肠上皮细胞中的Kdm2a后,小鼠的菌群结构、结肠形态和肠道屏障有所恢复,炎症相关变化减轻,近视进展也受到了一定抑制。
菌群代谢物,连接肠道与眼睛的信使
肠道菌群在分解食物时,会产生大量代谢物。其中包括短链脂肪酸、胆汁酸衍生物、色氨酸代谢物以及其他小分子。这些物质不仅参与消化,还可能进入血液,调节免疫、炎症和组织代谢。
短链脂肪酸:帮助维持屏障和免疫平衡
膳食纤维进入结肠后,可以被部分肠道细菌发酵,产生乙酸、丙酸和丁酸等短链脂肪酸。短链脂肪酸可以为肠上皮细胞提供能量,帮助维持肠道屏障,并参与调节免疫反应和炎症水平。
在一项结合孟德尔随机化和生物学注释的研究中,Megamonas funiformis与较低的近视风险相关,(OR为0.979)。
进一步分析提示,巨单胞菌产生的短链脂肪酸,可能抑制PI3K-Akt/HDAC相关信号,而这些通路又与炎症调节、巩膜胶原和细胞外基质重塑有关。这为“特定菌群—代谢物—巩膜变化”提供了一条可能的机制线索。
色氨酸代谢物:可能影响巩膜胶原
色氨酸进入肠道后,可以被部分细菌转化为吲哚类代谢物。其中,吲哚-3-乙酸(3-IAA)是目前近视研究中证据相对较完整的一种。
一项结合高近视患者分析、菌群移植和动物实验的研究发现,高近视人群中的Akkermansia显著减少,其丰度与眼轴长度呈负相关;与此同时,患者血浆中的3-IAA水平也明显降低,且Akk菌丰度与3-IAA水平呈正相关。
编辑
doi.org/10.1038/s41421-024-00709-5
研究者将健康人群的菌群移植给实验性近视小鼠后,小鼠血浆3-IAA水平升高,眼轴增长减缓,巩膜中的Ⅰ型胶原COL1A1也得到更好维持。直接给予小鼠3-IAA,同样减轻了近视性屈光变化和眼轴延长。
编辑
doi.org/10.1038/s41421-024-00709-5
进一步实验显示,3-IAA可能通过促进转录因子SP1与COL1A1基因结合,增加巩膜Ⅰ型胶原合成。
编辑
doi.org/10.1038/s41421-024-00709-5
胆汁酸和脂质代谢物:可能参与炎症和眼球生长
肠道菌群还参与胆汁酸和脂质代谢。胆汁酸不仅帮助消化脂肪,也能作为信号分子参与免疫、能量代谢和炎症调节。肠道菌群改变后,胆汁酸的种类和比例也可能发生变化。
2026年的一项炎症性近视大鼠研究发现,TGF-β2诱导近视后,大鼠出现眼轴延长、屈光度向近视方向变化,以及视网膜炎症信号升高。补充维生素D3后,近视进展和视网膜炎症有所减轻,同时肠道菌群结构和血清代谢物谱也发生了变化。
其中,研究观察到猪去氧胆酸(hyodeoxycholic acid,HDCA)以及多种咪唑类代谢物在不同实验组之间存在差异。
注:猪去氧胆酸是一种从猪胆汁中提取的天然胆烷酸。
胆汁酸和咪唑衍生物的组间差异
代谢产物与近视参数(眼轴长度和屈光度)间的相关系数
编辑
doi.org/10.3390/biom16070939
另一项孟德尔随机化研究,发现了一些具体菌群与脂质代谢物之间的联系。研究共分析了473种肠道微生物特征和233种代谢物。结果显示:
编辑
doi.org/10.1038/s41598-025-97722-9
在病理性近视中,研究还发现,较高的ω-6脂肪酸、亚油酸和多不饱和脂肪酸水平与风险升高相关。
这些发现提示,肠道菌群可能不是直接控制眼轴,而是先影响胆汁酸和脂质代谢,再通过炎症、血管状态和眼部组织代谢,间接参与近视进展。
神经递质:菌群可能间接影响视网膜信号
视网膜中的多巴胺,是调节眼球生长的重要信号之一;GABA等神经递质,也参与视觉信息的传递。
2024年一项比较近视与非近视人群肠道菌群的研究发现,近视人群中多种与多巴胺信号或GABA产生有关的细菌丰度存在差异,包括梭菌、瘤胃球菌、双歧杆菌、拟杆菌等。
其中,具有产生GABA能力的青春双歧杆菌在近视人群中相对更丰富,并且在稳定性近视者中高于进行性近视者。
这些结果提示,菌群与近视之间可能还存在神经信号方面的联系。
前面讲到,肠道菌群可能通过炎症、代谢物和神经递质等影响眼睛。但在孩子的日常生活中,近视不是孤立发生的。
长时间近距离用眼、频繁看屏幕、睡眠不足、学习压力常常同时出现。这些因素既可能直接影响眼睛,也可能改变神经内分泌、免疫状态和肠道微生态。
应激-近视通路的机制
编辑
doi.org/10.1016/j.neubiorev.2026.106668
各种近视危险因素(如遗传家族史、屏幕暴露、学业压力下的近距离工作、心理应激、环境因素等)可作为应激源,引起应激反应。
眼睛累了,并不等于眼轴正在变长
看完手机或写完作业后出现眼酸、眼胀、干涩、头痛或短暂视物模糊,通常属于用眼疲劳。
这类不适主要与持续近距离注视、调节紧张、眨眼减少和眼表干燥有关。而近视的核心变化是眼轴逐渐延长,两者不是同一个概念。
看屏幕时,眼睛首先发生的是眨眼变化
一项针对36名6~15岁儿童研究发现,连续使用手机玩游戏1小时后,儿童的眼干、疲劳和不适症状明显增加。
更直观的是,孩子的眨眼频率从每分钟约20.8次降至8.9次,眨眼间隔也明显延长。这种变化在开始使用手机后的第一分钟就已经出现,并持续了整个实验过程。
眨眼相当于不断为眼表补充和铺平泪膜。眨眼减少后,眼球表面暴露时间变长,孩子就更容易出现干涩、异物感和疲劳。
干眼研究,为菌群和眼部关联提供旁证
虽然屏幕引起的眼疲劳与菌群之间缺乏直接证据,但干眼研究已经发现,肠道微生态可能通过免疫和代谢信号影响泪腺、角膜和结膜。
部分临床研究观察到,免疫相关干眼患者存在肠道菌群改变;动物实验中,抗生素引起的菌群紊乱还可能加重眼表炎症和屏障损伤。
注:这些证据目前主要集中在干燥综合征等免疫相关干眼。对于屏幕使用导致的蒸发性干眼、普通眼疲劳或环境相关干眼,肠道菌群的证据仍然比较间接。
睡得早晚,可能与儿童菌群组成有关
2024年一项研究纳入88名2~14岁的健康儿童,根据入睡时间分为21:30以前入睡和21:30以后入睡两组。结果发现,两组儿童的肠道菌群组成和多样性存在差异。
在较早入睡的儿童中,研究观察到以下细菌的相对丰度较高:
这项研究说明,儿童的作息时间可能与菌群状态有关。
研究显示,目前儿童睡眠研究涉及睡眠时长、质量、时间和效率等多个方面,但不同研究之间差异较大。睡眠可能更像一个共同背景因素:睡得晚的孩子可能同时看屏幕更久、户外活动更少、生活节律更不规律。这些因素又可能共同影响眼睛和肠道。
长期压力,可能同时影响肠道和眼睛
长期学习压力、睡眠不足、持续紧张,会反复激活下丘脑-垂体-肾上腺轴和交感神经系统,使糖皮质激素、肾上腺素和去甲肾上腺素等应激信号持续升高。
这些变化不仅作用于大脑和眼睛,也会影响肠道。
压力会影响肠道状态
长期应激可能改变肠道蠕动、分泌和免疫环境,同时削弱肠道屏障,使肠道微生态更容易受到扰动。
肠道屏障受损后,脂多糖等细菌成分可能更容易进入血液;菌群产生的短链脂肪酸、吲哚类等代谢信号也可能发生变化。它们如何影响眼睛,前文已经分别介绍过。
肠-脑-眼轴功能障碍在近视中的作用
编辑
doi.org/10.1016/j.neubiorev.2026.106668
慢性应激反应导致肠道菌群失调和肠漏,从而导致代谢物和内毒素进入血液并到达眼睛,引发氧化应激和炎症反应。肠-脑-眼轴还通过下丘脑-垂体-肾上腺轴(HPA)、肠神经系统(ENS)和迷走神经(VN)通路参与眼部神经内分泌、免疫和代谢调节,上调脂多糖(LPS)、活性氧(ROS)和细胞因子,下调短链脂肪酸(SCFA)、吲哚-3-乙酸(3-IAA)、多巴胺(DA)等,导致眼轴伸长。
交感神经兴奋,也可能直接影响眼睛
长期交感神经兴奋可能使脉络膜血管收缩、血流下降。
一项为期1年的纵向研究纳入了273名小学二、三年级学生。研究人员检测晨尿中的肾上腺素、去甲肾上腺素和多巴胺,以评估交感神经系统的活跃程度。
结果发现,交感神经活动越强,儿童的脉络膜往往越薄,眼轴增长也越快。其中,尿液中每增加1 μg/L去甲肾上腺素,眼轴延长速度约增加0.002毫米。进一步分析提示,交感神经活动可能部分通过脉络膜变薄,与眼轴增长发生联系。
这提示,压力可能一边影响肠道屏障和微生态,另一边直接影响眼部血流和眼球生长。
自主神经功能紊乱在近视中的作用
编辑
doi.org/10.1016/j.neubiorev.2026.106668
男孩象征着由SNS介导的“战斗或逃跑”反应,而女孩象征着由PNS介导的“休息和消化”状态。慢性应激反应导致ANS功能紊乱,激活SNS并抑制PNS,从而导致代谢加速和恢复不足。NE和NPY升高,Ach、VIP和NO降低,导致脉络膜缺氧、眼压升高和调节滞后。这些变化激活了信号通路(例如H3K18/Notch1、F-Actin/YAP/TAZ、ON/OFF-BC等),导致COL-1、PGs/GAGs减少,从而引起眼轴延长。
因此,压力可能通过两条路径与近视产生联系:
压力通过肠道推动近视,目前仍是一种具有机制依据、但尚待临床研究证实的假说。
总之,屏幕使用对眼睛最直接的影响,是近距离用眼增加、眨眼减少和眼表不适;睡眠紊乱和长期压力,则可能同时影响自主神经、激素水平、肠道屏障和微生态状态。因此,肠道菌群是生活方式与眼健康之间的一个调节环节。
现有研究已经尝试从菌群、微生物代谢物、肠道屏障、神经调节、炎症、氧化应激等多个方向进行干预,但大部分证据来自动物实验或机制研究。
饮食模式
饮食模式:均衡地摄入肉蛋白和蔬果类
一项研究使用了中国儿童营养与健康调查的数据,覆盖14个省份、28个县区。最终纳入了7423名10-11岁儿童,其中1746人报告有近视,近视比例为23.5%。
研究人员用一份包含72种食物的食物频率问卷,了解儿童过去一个月的日常饮食,并将食物归为11大类,包括谷薯类、豆类、蔬菜、水果、奶类、肉类、水产品、蛋类、零食和饮料等。随后通过主成分分析,归纳出几种典型饮食模式。
编辑
研究发现,更符合饮食模式A和饮食模式C的儿童,近视的可能性相对较低。
在调整年龄、性别、城乡、南北地区、营养状况、身体活动、屏幕时间和睡眠等因素后:
饮食模式A依从性最高组,相比最低组近视检出可能性较低,OR为0.78(95% CI:0.66~0.92)。
饮食模式C依从性最高组,相比最低组近视检出可能性较低,OR为0.68(95% CI:0.58~0.80)。
作者因此认为,较均衡地摄入肉、水产品、奶、蛋、豆类,同时摄入蔬菜、水果和谷薯类,可能与较低的儿童近视风险相关。
作者推测,这些饮食模式可能通过动物蛋白、维生素、矿物质、叶黄素、花青素及抗氧化成分等,对眼球生长、视网膜功能或睫状肌状态产生影响。模式A和模式C的食物构成,也与“江南饮食”或地中海式健康饮食有一定相似性。
地中海饮食
地中海饮食以蔬菜、水果、豆类、全谷物、坚果、鱼类、橄榄油为主要组成。
关于地中海饮食,以下是干眼相关研究提供的一些旁证。
干眼相关研究提出,地中海饮食中的膳食纤维、多酚、ω-3脂肪酸、维生素和抗氧化食物,可能通过降低氧化应激和炎症、改善脂质代谢、支持泪膜脂质层,并调节肠道菌群代谢,影响眼表稳态。
2025年的干燥综合征研究。研究纳入114名干燥综合征患者,地中海饮食依从性评分越高,患者报告的眼干症状越轻,饮食评分与OSDI呈较强负相关,相关系数为−0.73;其中,多不饱和脂肪酸摄入相关评分与OSDI的相关系数为−0.67。
全谷物:可以作为饮食模式的补充
有人提出,经历快速经济转型的群体饮食结构的改变,可能是近视患病率在代际间快速增长的部分原因。
在对586名 6-12 岁儿童进行的横断面流行病学研究中,全谷物摄入量(>50%)是预防近视的独立保护因素,尤其是在 9-12 岁的儿童中。
哪些饮食因素可能不利:高糖、高盐
来自中国 11-14 岁儿童的证据表明,甜食(如蛋糕、蜜饯、糖果、巧克力和冰淇淋)的摄入与较高的近视患病率有关。
Kim和Choi分析了韩国5~12岁儿童的营养摄入与近视情况。结果显示,碳水化合物、蛋白质、磷、铁、钾和钠摄入较高,均与较高的近视可能性相关。其中,钠摄入过量的儿童,近视可能性较高。
编辑
doi: 10.3390/epidemiologia5010003
对于盐与眼轴之间的联系,Brown等提出了一种可能机制:较多的氯化钠摄入可能提高视网膜细胞膜的离子通透性,增加玻璃体内外的渗透梯度,使更多液体进入玻璃体。长期的液体潴留可能增加眼球组织承受的机械牵拉,并参与眼轴延长。
宏量营养素
脂肪:摄入适量,合理的结构比例
脂肪是细胞膜、视网膜和神经组织的重要组成部分,也参与脂溶性维生素吸收和炎症介质合成。
香港儿童研究发现,较低的总脂肪和胆固醇摄入与之后发生近视有关;韩国研究也观察到,近视儿童的总脂肪、ω-3脂肪酸和视黄醇摄入低于正视或远视儿童。
但脂肪并不是摄入越多越好。
新加坡儿童近视危险因素队列中分析了851名儿童的膳食摄入和眼球生物学参数。多种营养素中,饱和脂肪和胆固醇摄入较高,与较长的眼轴存在正相关。
饱和脂肪和胆固醇可能通过脂质代谢、低度炎症、血管功能及脉络膜循环影响眼球生长环境。
因此,需要区分:
编辑
ω-3脂肪酸
ω-3多不饱和脂肪酸,主要包括EPA和DHA。
动物研究显示,每日补充含300 mg DHA和60 mg EPA的ω-3脂肪酸,可以减轻豚鼠和小鼠的实验性近视。研究者认为,ω-3脂肪酸可能改善脉络膜血流、缓解眼部缺氧,并减少与巩膜重塑有关的异常信号。
在人群研究中,口服ω-3脂肪酸与脉络膜血流改善有关。另一项针对12~19岁人群的研究发现,当膳食EPA摄入达到每1000千卡至少11 mg时,高度近视的可能性较低。EPA可能通过促进血管平滑肌舒张和血管扩张,改善眼部组织灌注。
婴幼儿时期的脂肪酸来源也可能产生影响。研究发现,母乳中含有较多DHA和花生四烯酸等多不饱和脂肪酸,母乳喂养的新生儿之后发生近视的风险相对较低。
注:动物实验中使用的“300 mg DHA+60 mg EPA”是针对实验动物的研究剂量,不能直接作为儿童补充剂量。对于儿童来说,优先从深海鱼等日常食物中获得,更符合膳食干预的逻辑。
编辑
ω-6脂肪酸
ω-6脂肪酸同样属于多不饱和脂肪酸,广泛存在于多种植物油和坚果中。这并不意味着应当单独大量补充ω-6脂肪酸。ω-6脂肪酸可以参与细胞膜组成和生长发育,但其部分代谢产物也可能参与炎症反应。
它对眼球发育的影响可能与ω-3和ω-6之间的比例、脂肪来源以及整体饮食背景有关,而不能只看一种脂肪酸的绝对摄入量。
蛋白质:避免摄入不足和摄入过多
香港一项包含92名儿童的研究也发现,7岁时总能量、蛋白质、脂肪和胆固醇摄入较低的儿童,后来更容易发生近视。
与这些结果相反,部分中国和韩国研究发现,近视儿童的蛋白质摄入反而较高。新加坡儿童研究则没有发现蛋白质摄入与近视之间存在明显关系。
这些差异说明,蛋白质的影响可能取决于儿童原本的营养状况、蛋白质来源以及整体饮食结构。现阶段更合理的结论不是额外大量补充蛋白质,而是保证儿童能够从鱼虾、蛋类、奶类、豆类和适量瘦肉中获得充足而多样的优质蛋白。
编辑
总体能量摄入:营养不足和代谢过剩都值得关注
部分研究发现,总能量摄入较低的儿童更容易发生近视;但另一些研究则观察到,超重和肥胖儿童的近视或高度近视可能性更高。
在韩国儿童和青少年研究中,肥胖者发生高度近视的可能性高于正常体重者;女孩中的关联更明显。研究者推测,这可能与胰岛素抵抗、IGF-1信号和青春期生长有关。
中国儿童调查中,超重和肥胖儿童的近视检出率为26.0%,高于正常体重儿童的22.6%以及生长迟缓或消瘦儿童的18.3%。不过,这只是横断面差异,不能说明肥胖直接导致近视。
总的来说,这提示,儿童近视相关饮食不能走向两个极端:既要避免能量、蛋白质和必需脂肪酸摄入不足,也要减少高糖、高饱和脂肪和过量能量带来的肥胖及代谢压力。
营养补充剂和天然活性成分
维生素D:与户外活动、眼轴和炎症同时相关
维生素D是近视营养研究中讨论最多的成分之一。
一项儿童队列研究发现,血清25-羟维生素D,也就是25(OH)D水平,与眼轴长度和近视存在关联。
中国儿童研究也观察到,近视儿童与非近视儿童的血清25(OH)D水平存在差异;另有学生研究提出,维生素D结合日光暴露可能减缓近视进展。
维生素D包括维生素D3和维生素D2。维生素D3可以由皮肤接受日光照射后生成,也可以从脂肪含量较高的鱼类等食物中获得;维生素D2则主要来自酵母和部分真菌类食物。
编辑
不过,维生素D研究的结果并不完全一致。
Lingham等在澳大利亚中老年人中没有发现低25(OH)D水平与屈光状态有关;
Li等在中国儿童和青少年中也没有观察到低血清维生素D与近视之间的明确相关性。
这种差异可能是因为维生素D水平还同时反映户外时间、日照、饮食、体脂和生活方式。
肠道菌群检测可以从微生态角度评估部分维生素相关的代谢潜力,为了解影响视网膜功能、炎症调节和眼球发育的营养背景提供参考,帮助找到更值得优先调整的饮食和营养环节。
编辑
<来源:谷禾肠道菌群检测数据库>
维生素C:较高摄入与较低的近视检出率相关
一项营养调查显示,维生素C摄入较高的人群,近视检出可能性约为低摄入人群的0.62倍。
注:这项结果反映的是膳食摄入与近视之间的关联,并不是维生素C补充剂随机试验。水果和蔬菜中除了维生素C,还含有膳食纤维、多酚和类胡萝卜素,因此很难将观察到的关系完全归因于维生素C。
维生素A和视黄酸:缺乏会损伤视力
维生素A对视网膜感光功能非常重要,严重缺乏可以导致夜盲、角膜损伤,甚至儿童失明。
编辑
动物研究中,维生素A的活性代谢物视黄酸会参与眼球生长和近视相关信号调节。
对642名参与者进行了长期随访,分别在14岁、17岁和20岁评估维生素A摄入,并在20岁时进行眼科检查。结果没有发现维生素A摄入量与屈光状态之间存在显著关联。
这表明维持正常视觉功能与控制眼轴增长可能涉及不同的机制。
花青素:主要影响视疲劳和暂时性屈光变化
花青素是一类存在于黑加仑、蓝莓和其他深色浆果中的多酚成分。
编辑
在健康人群中研究了口服黑加仑花青素的作用。结果显示,补充花青素可以减轻长时间使用视觉显示终端后出现的暂时性屈光变化,并对暗适应产生一定改善作用。
蓝莓来源的花青素也表现出一定的睫状肌舒张作用,可能帮助缓解持续近距离用眼后出现的调节紧张。
注:这里观察到的主要是视疲劳和暂时性近视偏移,并不是由眼轴增长造成的结构性近视。
叶黄素和类胡萝卜素:有视网膜保护机制
叶黄素和玉米黄质广泛存在于菠菜、羽衣甘蓝等深绿色蔬菜中,是常见的膳食类胡萝卜素。相关研究显示,补充叶黄素可以改善视网膜光感受器功能和视觉表现。
编辑
人群研究还发现,血浆叶黄素水平较高的人群,近视发生可能性降低。
水果和蔬菜中还含有β-胡萝卜素等多种植物化学物质。
前面我们说到的以蔬菜、水果、谷物和薯类为主要特征的饮食模式与较低近视检出率相关,类胡萝卜素可能是其中的一类功能成分,但不能单独解释整体饮食模式的作用。
白藜芦醇:抑制炎症和巩膜组织重塑
白藜芦醇是一种存在于葡萄、浆果、花生等食物中的多酚。
编辑
Hsu等在视网膜色素上皮细胞和近视动物模型中研究了白藜芦醇的作用。与对照组相比,接受白藜芦醇干预的仓鼠眼轴相对较短。
进一步检测发现,白藜芦醇降低了多种与近视相关的炎症和组织重塑指标,包括:TGF-β;MMP-2;TNF-α;IL-6;IL-1β。
与此同时,巩膜中的Ⅰ型胶原表达增加。
这提示白藜芦醇可能通过抑制炎症、减少胶原降解并维持巩膜细胞外基质,减轻实验性近视进展。
槲皮素:抑制PERK-EIF2α信号通路,改善巩膜重塑
槲皮素是一种植物类黄酮,具有抗氧化和抗炎特性。
研究表明,槲皮素通过抑制PERK-EIF2α信号通路,降低细胞内钙离子和活性氧,改善巩膜重塑,从而减缓近视进展。
在小鼠模型中,槲皮素显著降低了屈光误差和眼轴长度,改善了巩膜厚度和胶原纤维排列。组织学分析显示,槲皮素增加了胶原I和TIMP-2的表达,同时降低了MMP-2水平,表明其在调节巩膜重塑方面的重要作用。
藏红花酸:从小鼠实验走向儿童试验
藏红花酸(crocetin)是一种天然的类胡萝卜素衍生物,存在于藏红花和栀子等植物中。
Mori等在镜片诱导近视小鼠中发现,口服藏红花酸可以抑制屈光度向近视方向偏移,并减轻眼轴延长。
研究者认为,藏红花酸可能通过改善脉络膜循环、增加眼部组织灌注和减轻缺氧信号,并调节EGR1等眼球生长信号发挥作用。
同一研究团队随后开展了儿童随机临床试验,探索膳食补充藏红花酸对近视控制的作用。这使藏红花酸成为少数既有动物实验、又已经进入儿童临床探索的天然活性成分之一。
69名6~12岁近视儿童,每日补充7.5 mg藏红花酸,持续24周。藏红花酸组的近视性屈光变化为−0.33 D,安慰剂组为−0.41 D;眼轴分别增长0.18 mm和0.21 mm。藏红花酸组还表现出较好的脉络膜厚度变化。
7-甲基黄嘌呤:可能直接影响巩膜胶原
7-甲基黄嘌呤(7-methylxanthine,7-MX)是咖啡因代谢过程中产生的一种黄嘌呤类物质。
相关研究提出,7-MX可能直接影响巩膜胶原含量和巩膜机械强度,也可能通过视网膜中的毒蕈碱型乙酰胆碱受体、多巴胺信号或其他神经递质通路调节眼球生长。
Mrugacz等将7-MX列为可能帮助控制近视进展的活性成分,但没有给出具体干预剂量、眼轴差值或儿童试验数据。
没食子酸:抗氧化和一氧化氮信号的机制线索
没食子酸是一种多酚类物质,存在于茶叶、草莓、香蕉、菠萝和柠檬等多种植物性食物中。
编辑
相关实验发现,没食子酸可以减少内皮型一氧化氮合酶eNOS降解,帮助维持一氧化氮信号。在晶状体上皮细胞实验中,将没食子酸加入功能性高分子载体后,可以提高细胞抵抗过氧化氢所致氧化损伤的能力。
近视动物研究还显示,直接抑制视网膜一氧化氮合酶能够影响实验性近视形成,说明NO-cGMP信号可能参与眼球生长。
肠道菌群检测可以评估与多巴胺、一氧化氮等物质相关的微生物代谢潜力。多巴胺参与视网膜信号和眼球生长调节;一氧化氮与血管舒缩、炎症及氧化应激有关。
编辑
<来源:谷禾肠道菌群检测数据库>
当相关功能明显偏高或偏低时,可以进一步结合炎症、氧化应激、运动、睡眠、饮食情况寻找可能的影响因素。
锌和铜:缺乏可能与近视有关
锌参与维生素A代谢,并在视网膜和脉络膜中保持较高浓度。但是研究方向不一致。
Fedor等在儿童和青少年中发现,近视组的平均血清锌水平低于非近视对照组。其他一些研究也得到了相似结果。
但Burke等没有发现锌水平与近视之间存在明显关联。
研究还发现,素食者的膳食锌摄入和血清锌水平往往低于非素食者;一项印度青年调查中,素食者的近视检出率也相对较高。
注:这类结果可能同时受到饮食结构、生活方式和社会经济因素影响。
铜的研究方向相对一致。
部分儿童和青少年研究发现,近视者的血清铜水平较低;
Cai等通过头发微量元素分析发现,铜水平与近视程度呈负相关,即铜水平越低,近视程度往往越高。
益生菌
益生菌可能通过维持肠道屏障、抑制炎症、产生短链脂肪酸、调节胆汁酸、神经递质等途径,影响眼部组织或心理状态。
植物乳杆菌EP21,可能减缓大鼠的眼轴增长
Lin等在两种大鼠近视模型中发现,每日口服植物乳杆菌EP21、连续干预21天,可以减轻眼轴增长和近视性屈光变化。
在形觉剥夺模型中,EP21使眼轴增长由0.39 ± 0.02 mm降至0.24 ± 0.05 mm;在TGF-β2诱导的炎症性近视模型中,眼轴增长由0.27 ± 0.02 mm降至0.20 ± 0.02 mm。
编辑
doi: 10.1080/19490976.2025.2534677
进一步研究显示,EP21可能通过抑制视网膜NF-κB、TNF-α、NLRP3和IL-1β等炎症信号,显著减少眼轴延长和屈光度偏移。
EP21分泌的膜囊泡能够穿越血-视网膜屏障并积聚于视网膜外节段,其携带的细菌miRNA通过调控炎症反应和泛素化通路(上调TNFAIP3、TNIP1、TAX1BP1)发挥抗近视作用。
乳杆菌科,可能参与高度近视相关焦虑
Mi等利用两步孟德尔随机化分析,研究高度近视、肠道菌群与焦虑之间的因果关系。研究纳入高度近视相关数据50,372人、焦虑数据21,761人。
两组独立分析合并后发现,高度近视与焦虑风险升高存在遗传因果关联,合并效应值为OR=8.76(95% CI:2.69~28.54)。
进一步的中介分析显示,高度近视可能导致肠道乳杆菌科(Lactobacillaceae)减少,而乳杆菌科减少又与焦虑风险升高有关。
具体来看,高度近视对乳杆菌科的效应值为β=-1.742;乳杆菌科对焦虑的效应值为β=-0.297。乳杆菌科在“高度近视导致焦虑”的过程中估计介导了约20.3%的效应。
编辑
doi.org/10.1007/s13167-024-00387-z
研究者还总结了多种乳杆菌调节情绪的实验线索。例如,罗伊氏乳杆菌NK33在动物研究中减轻了焦虑和抑郁样行为;干酪乳杆菌及其相关制剂可能通过调节菌群介导的炎症和脑源性神经营养因子BDNF表达,改善焦虑和抑郁样表现,Lactobacillus mucosae也显示出相似作用。
部分乳杆菌,尤其是短乳杆菌(Lactobacillus brevis),能够将L-谷氨酸转化为抑制性神经递质GABA,可能参与压力和焦虑调节。
另有动物研究发现,乳杆菌能够维持稳态IFN-γ水平,帮助机体抵抗环境应激。
接下来,我们来了解一些来自眼表和心理研究的旁证:干眼相关研究也提供了另一类证据。虽然没有证明益生菌能够减缓近视眼轴增长,但说明特定菌株可能与远端眼组织及心理状态有关联。
两歧双歧杆菌BB00(术后干眼)
在眼表研究中,一项双盲、随机、安慰剂对照试验,接受FS-LASIK手术的受试者连续30天服用两歧双歧杆菌BB00(Bifidobacterium bifidum BB00),每天剂量为2 × 10⁹CFU。
结果显示,补充BB00后,术后干眼发生率降低,眼表疾病指数OSDI、泪膜破裂时间FBUT和Schirmer I泪液分泌试验均有所改善。16S rRNA测序还显示,部分术后菌群变化出现逆转。
IRT5复合益生菌
在实验性干眼小鼠中发现,补充IRT5复合益生菌后,眼表损伤有所减轻,泪液分泌增加,同时伴随肠道菌群变化。
进一步发现,在自身免疫性干眼小鼠中,IRT5能够改变泪腺内多种免疫调节蛋白的表达,增强Treg相关调节并减少促炎反应,提示益生菌可能通过重塑泪腺免疫环境影响眼表。
合生元
双歧杆菌与低聚果糖组成的合生元
Chisari等研究了含双歧杆菌和低聚果糖的合生元。结果显示,部分干眼患者的眼表损伤和泪膜相关指标得到改善。
Tavakoli等随后开展的双盲随机试验也观察到,口服益生菌和益生元后,部分干眼症状及眼表指标有所改善。
不过,不同研究中的症状、客观体征和炎症指标并不总是同步变化,说明干预结果还受到菌株组合、剂量、疗程和干眼类型的影响。
运动和户外
在儿童近视的生活方式干预中,户外活动是证据相对明确的一项。它既减少持续近距离用眼,也让眼睛接触更强、更丰富的自然光照。
编辑
每天户外超过2小时,与较低的近视风险相关
悉尼近视研究发现,每天进行超过2小时户外活动的儿童,近视风险明显较低。中国学校开展的随机临床试验也显示,在学校课程中增加户外活动时间,可以减少儿童新发近视。
Sherwin等对既往研究进行系统综述和荟萃分析后估算,儿童和青少年每周户外时间每增加1小时,发生近视的可能性约下降2%。
户外活动预防发生,不一定控制已形成的近视
Xiong等的研究显示,增加户外时间可以降低儿童新发近视率,但对于已经近视的儿童,并未观察到明确的近视进展减缓效果。
这提示户外活动的优势可能主要体现在近视发生之前,尤其适合父母近视、远视储备不足或尚未近视的儿童。
为什么户外光照可能抑制眼球过度生长?
首先,户外光照强度通常远高于室内环境。明亮光线可能激活视网膜中的多巴胺能无长突细胞,增加视网膜多巴胺信号。多巴胺被认为是调节眼球生长的重要信号之一,可能抑制眼轴过度延长。
其次,户外环境拥有更远的视距和更丰富的空间层次,可以减少长时间固定近距离调节。自然光的光谱组成也与室内照明不同,可能影响视网膜对眼球生长信号的处理。
室内变亮,不完全等同于户外活动
动物实验中,提高环境光照强度甚至可以明显抑制实验性近视。
但户外活动是否主要通过紫外线和维生素D发挥作用,研究结果并不一致。
单纯改善室内照明、增加工作间歇、眺望远处或调整桌椅高度,尚未显示出与户外活动相同的近视预防效果。
这并不是说用眼休息没有价值,而是说,短暂远眺或开亮室内灯,目前不能被视为户外活动的等效替代方案。
羽毛球和乒乓球:可能改善视觉调节
Liu等对儿童和青少年运动干预进行网络荟萃分析后认为,在不同运动方式中,羽毛球和乒乓球对视觉健康的综合效果较为突出。
编辑
这类运动需要持续追踪快速移动的球,并在不同距离之间频繁切换视线,可能促进睫状肌交替收缩和放松,缓解长时间注视固定近距离目标造成的视疲劳。
然而,也有部分研究甚至没有发现室内运动时间与近视之间存在关联。因此,与其强调某一种特殊运动,更有依据的做法是:
优先保证儿童每天有充足的户外时间,再在户外活动中选择跑步、球类、骑行或游戏等孩子能够长期坚持的运动。
生活方式
近距离用眼:持续时间和阅读距离可能比看屏幕更重要
阅读、写作和电子设备使用都属于近距离用眼。长时间注视近距离目标时,眼睛需要持续调节;如果调节反应不足,视网膜可能出现一定的远视性离焦,被认为可能向眼球传递促进眼轴增长的信号。
近距离学习是儿童近视研究中最常见的环境因素之一。需要关注:距离是否过近、是否长时间不间断、是否伴随大量学习任务,以及屏幕使用是否挤占了户外和睡眠时间。
编辑
休息、远眺和改善照明:有助于缓解疲劳
增加学习工作间歇、远眺和改善室内照明,经常被用于缓解近距离用眼后的眼疲劳。桌椅高度和阅读姿势也会影响舒适度及观看距离。
睡眠:部分研究认为睡得少风险更高
睡眠可能通过昼夜节律、激素分泌、户外时间和近距离用眼行为影响眼球发育,也可能让持续紧张的睫状肌得到放松。
Wei等对12~19岁韩国青少年的研究显示,睡眠时间越短,近视越常见。Xu等发现,每天睡眠9小时的儿童,近视风险低于每天睡眠不超过7小时者;Ayaki等也观察到,高度近视儿童的睡眠时间最短。
但另一些研究没有得到相同结果。因此,睡眠可能是近视风险中的一部分,但目前不能说多睡一定就能减缓眼轴。保证充足、规律的睡眠,更重要的意义可能是减少夜间近距离用眼,并维持正常的昼夜节律和身心状态。
学业压力和心理应激:可能放大近距离用眼的影响
学业压力往往与长时间近距离学习、屏幕暴露、睡眠不足、户外活动减少同时出现,很难把它们完全分开。因此,也应关注作业负担、焦虑、睡眠和休息时间等。
编辑
二手烟:婴幼儿期暴露可能与早发近视有关
近视相关生活方式管理不仅涉及孩子本人,也涉及家庭环境。
Chua等研究了197名从出生至6个月期间接触二手烟的儿童。与没有暴露的儿童相比,早期接触烟草烟雾者后来出现近视的情况更多;如果家人在家中、汽车内或儿童身边吸烟,关联更加明显。
避免孕期和婴幼儿期烟草暴露,具有明确的全身健康价值,也可能降低早发近视风险。
以上这些措施更适合用于降低近视发生风险和改善整体健康。对于已经发生并持续进展的近视,生活方式管理仍然重要,但需要与规范验光、眼轴监测及有效的光学等干预结合。
光学和药物控制
目前儿童近视控制还包括DIMS框架镜、多焦点隐形眼镜、角膜塑形镜和阿托品滴眼液等措施。这些比较常见的光学干预手段本文不再展开介绍。
儿童近视并不是一个孤立发生在眼睛里的问题。眼轴增长背后,还交织着生长发育、饮食营养、免疫代谢、睡眠、压力、生活方式等多方面因素。“肠-眼轴”的提出,正是让我们开始从更完整的身体环境中理解近视。
围绕肠道和营养的干预,也不是补得越多越好。不同儿童的饮食结构、菌群基础和代谢能力存在差异,同一种膳食纤维、益生菌或营养补充剂,产生的反应也可能不同。因此,在调整饮食和营养时,除了了解孩子平时吃什么,也可以结合菌群组成和相关功能评估,找到更值得优先改善的环节。
未来,随着眼科检查、微生态检测、代谢组学和儿童健康数据逐步融合,近视防控有望从相对统一的健康建议,走向更早的更精细的风险识别和个体化管理。一套将眼轴、屈光度、饮食、菌群和生活方式共同纳入的儿童眼健康管理体系值得期待。
儿童青少年近视防控,正在从单纯关注眼睛,走向对生长发育和整体健康的系统管理。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Omar WEW, Singh G, McBain AJ, Cruickshank F, Radhakrishnan H. Gut Microbiota Profiles in Myopes and Nonmyopes. Invest Ophthalmol Vis Sci. 2024 May 1;65(5):2.
Tien PT, Wei CC, Lin SC, Meng PP, Huang YT, Chen JJ, Wu MY, Shih YH, Hsu TJ, Tsai FJ, Wang YC, Lin HJ, Wan L. Early-life exposure to antibiotics increases the risk of myopia: A retrospective cohort study. Biomedicine (Taipei). 2026 Jun 1;16(2):75-86.
Luan Z, Zheng Y, Zhang N, Chen Y, Wei S, Ren G, Kong F, Ju D, Hao R. Sex-specific associations between gut microbiota and myopia in adolescents: a clinical predictive modeling study. Front Cell Infect Microbiol. 2026 May 28;16:1778840.
Li Y, Tan Z, Duan J. The stress-myopia pathway: A pivotal hub in myopia pathogenesis. Neurosci Biobehav Rev. 2026 Jul;186:106668.
Zhang Z, Liao D, Zhao L, Lu X. Gut-ocular surface axis in dry eye disease: phenotype-specific mechanisms, evidence, and microbiome-targeted interventions. Front Cell Infect Microbiol. 2026 Jul 6;16:1873050.
谷禾健康
近年来,肠道菌群检测越来越受到关注。无论是个性化营养管理、益生菌补充、慢病风险管理、体重管理,还是肠道功能改善和微生态干预,很多服务都会把肠道菌群检测作为重要参考。
肠道菌群检测也正在从科研工具逐步进入健康管理、慢病风险评估、营养干预、药物反应研究及部分临床辅助场景。
因此肠道菌群检测也越来越常见。然而,公众对肠道菌群检测的理解常常存在两个极端。
从目前的研究和应用现状来看,肠道菌群检测的意义需要放在具体场景中评估。过度放大其预测和干预能力并不科学,而因其仍在发展中就完全否定其价值也不正确。更准确地说,肠道菌群检测是一种具有参考价值的微生态评估工具,其可靠性和应用价值取决于检测目的、技术路径、质量控制、数据库基础、算法模型和解读水平。
很多消费者会觉得:不就是取一点粪便样本,送到实验室测一测,然后出一份报告吗?
从表面看,流程似乎并不复杂,甚至有些机构的报告形式也很相似:列出有哪些菌、哪些菌多了、哪些菌少了,再给出一些饮食或益生菌建议…
今天,谷禾君想结合多年肠道菌群高通量测序检测与分析的实际经验,尤其是在 CNAS 认可和质量体系管理要求下形成的质量控制实践,和大家一起客观聊聊肠道菌群检测的科学价值、应用边界与合理解读。
菌群谱是报告的底层基础,基础不稳,后面的解释就会偏
一份肠道菌群检测报告,通常可以分为几个重要板块。第一大板块就是菌群谱,也就是回答几个最基础的问题:
这一部分相当于一座大楼的水泥、钢筋和砖块,是所有后续分析的基础。后面无论是多样性分析、功能预测、营养代谢评估、炎症风险判断,还是个性化干预建议,都建立在菌群谱是否准确的前提上。
但也正是在这个最基础的环节,最容易引入技术偏差。
样本采集与保存:结果偏差可能从第一步开始
粪便样本并不是普通样本,其中含有大量微生物、宿主细胞、食物残渣、代谢产物以及可能影响后续检测的抑制性物质。
从采样完成到实验室检测之间,样本仍可能受到时间、温度、氧气暴露和运输条件等因素影响。一些对环境变化较为敏感的菌群成分,可能在保存或运输过程中发生比例变化,从而影响最终检测结果对原始肠道状态的反映。
因此,在实际检测中,通常会结合检测目标和技术路线,选择经过验证的样本保存方案,并配套明确的采样说明、运输要求和样本接收标准。需要强调的是,任何保存方式都不是对样本原始状态的“绝对锁定”,但规范化的保存和质控流程,可以尽可能减少样本在采集后到检测前发生的非目标性变化,从而提高检测结果的可靠性。
DNA提取:不同细菌被看见的机会并不一样
肠道菌群由大量不同类型的微生物组成,不同细菌在细胞壁结构、细胞膜特性以及对裂解条件的敏感性上存在差异。有些细菌较容易被裂解并释放 DNA,而有些细菌结构较为坚韧,如果裂解不充分,其 DNA 可能无法被充分提取出来。
因此,DNA 提取并不是一个简单的“把 DNA 提出来”的过程。对于粪便这类成分复杂的样本,如果提取方法没有结合肠道菌群特点进行优化和验证,就可能造成不同菌群 DNA 回收效率不一致:某些菌更容易被检测到,某些菌则可能被低估。
也就是说,检测报告中呈现的菌群比例,不仅受到样本本身组成的影响,也可能受到 DNA 提取方法、裂解强度和纯化效率等实验环节的影响。专业检测通常会通过标准化提取流程、适当的裂解策略、质控指标和方法学验证,尽量减少这类技术偏差,使检测结果更稳定、更具有可比性。
建库和测序:流程参数会影响最终读数
建库和测序是将样本中提取到的微生物DNA 转化为可被测序仪识别和读取的数据的过程。
不同技术路线对应的实验流程并不完全相同。
此外,实验室环境中的微量污染、试剂中的背景 DNA,或不同批次操作带来的细微差异,也可能在某些情况下影响检测结果,尤其是在低生物量样本或样本质量不佳时更需要关注。
因此,专业检测通常不会只依赖单一实验步骤,而是会通过阴性对照、阳性对照、标准菌群样本、重复检测、批次质控和流程验证等方式,对建库和测序过程中的潜在偏差进行识别、监测和控制,从而尽量提高检测结果的稳定性、可比性和可解释性。
原始数据到可用数据,中间不是自动生成那么简单
测序仪下机后得到的通常是FASTQ原始数据。FASTQ文件中不仅包含序列信息,也包含每个碱基的质量值。一般可能认为以为测序完成就等于结果出来。事实上,原始数据距离真正可用于分析的clean data,还有一整套质量控制流程。
质控流程决定哪些数据可以进入后续分析
这些流程包括去除低质量序列、去除接头污染、过滤过短或异常序列、识别嵌合体、合并双端序列、去除宿主污染序列、评估测序深度和样本有效数据量等。
对于宏基因组测序,还涉及更复杂的拼接、基因预测、物种注释、功能注释和丰度计算。
参数设置过松或过严,都会影响结果
如果质控参数设置过松,低质量数据会进入后续分析,带来假阳性;如果设置过严,又可能损失有效信息,导致某些低丰度但重要的菌被过滤掉。
因此,生物信息分析并不是简单套用软件流程,而是需要根据样本类型、测序技术、研究目的和验证结果不断优化。
更关键的是,同一份原始数据,使用不同的分析流程、不同的参数、不同的数据库,最终得到的物种组成可能不完全相同。这也是为什么不同检测机构之间有时会出现结果差异的原因之一。其中参考注释数据库的带来的差异是最大的,这也是我们后面会重点讲的。
数据库和注释方法是影响结果解读的重要环节
测到的这段序列,到底对应哪一种菌?
这是肠道菌群检测不可忽略的问题之一。
目前很多实验室会使用公开数据库,例如16S领域常用的Greengenes、SILVA、RDP等,宏基因组领域则可能使用NCBI、GTDB、UHGG、MetaPhlAn相关数据库等。
这些公共数据库为科学研究和方法开发提供了重要基础,但在实际检测和报告解读中,数据库是否适配人体肠道样本、是否持续更新、是否经过标准样本和真实样本验证,都会影响最终注释结果的准确性和稳定性。
这些问题在数据分析阶段看似只是“注释差异”,但进入报告解读后,可能会进一步影响菌群特征判断、功能推测、风险提示以及个性化建议。因此,肠道菌群检测的可靠性不仅取决于是否使用了某个数据库,更取决于数据库与检测场景的匹配程度、算法流程的验证情况,以及实验室对注释结果进行评估和校正的能力。
谷禾更倾向于采用一种相对稳妥的分析思路:在公共数据库的基础上,结合长期积累的人体肠道样本数据、标准菌群验证结果、算法优化经验以及注释准确性评估体系,对检测结果进行多维度综合判断。
这样既能充分利用公共数据库的开放资源和学术基础,也能根据人体肠道菌群检测的实际场景,对数据库覆盖不足、分类体系差异或算法适配性问题进行识别和校正,从而尽量减少由数据库和注释方法带来的系统性偏差。
正常参考范围决定异常判断可靠性
超标和缺乏,背后依赖的是参考范围
在肠道菌群检测报告中,最容易影响用户判断和后续决策的内容,往往是“某某菌偏高”“某某菌偏低”“某类风险相关菌增加”等提示。而这些判断并不是单纯由检测数值本身决定的,背后还依赖于一个非常重要的基础——参考范围。
所谓“超标”或“缺乏”,本质上是将个体检测结果与某一参考人群或参考数据库进行比较后得到的相对判断。因此,参考范围如何建立,直接影响异常提示的稳定性和解释价值。
参考范围并不应是简单设定的固定边界
需要建立在足够规模、来源清晰、信息完整的人群数据基础上。理想情况下,参考人群应根据年龄、地区、饮食结构、生活方式、健康状态等因素进行合理分层,并结合检测技术路线和统计方法持续优化。否则,如果参考样本量不足,或人群结构与受检者差异较大,所谓“正常范围”就可能不够稳健。
这也意味着,不同实验室、不同数据库或不同算法模型给出的异常提示,可能存在差异。例如,某个菌被提示偏高,既可能确实反映个体菌群特征的改变,也可能与参考队列样本量、分层方式、边界设定或地区饮食差异有关。反过来,某个菌被提示偏低,也可能受到数据库分辨率、注释准确性或参考范围设定方式的影响。
尤其是在涉及潜在致病菌、条件致病菌、炎症相关菌、产毒素相关菌等信息时,更需要避免把报告提示直接等同于疾病诊断。菌群检测中的“检出”不等于感染,“相对丰度偏高”也不等于一定需要药物干预。
谷禾更建议以审慎、综合的方式理解菌群检测结果:检测报告提供的是微生态层面的参考信息,而不是单独用于诊断或干预决策的依据。报告中的风险提示,需要结合个体的症状表现、既往病史、用药情况、饮食结构、免疫状态、其他实验室检查结果,以及医生或专业人员的评估进行综合判断。只有将检测结果放回到具体个体的实际背景中,才能更准确、合理地理解其意义。
CNAS 认可与实验室质量体系:检测可靠性的基础
通过上面的描述,已经了解肠道菌群检测涉及样本采集、保存运输、DNA 提取、建库测序、数据分析和报告解读等多个环节。任何一个环节控制不充分,都可能影响最终结果的稳定性和可解释性。
CNAS 认可并不意味着检测结果可以直接等同于临床诊断,也不代表所有模型解释都天然成立。但它说明实验室在认可范围内,已围绕人员、设备、方法、样本流转、质量控制、记录追溯和报告签发等方面建立了较为规范的管理体系,并接受第三方官方评审。
对于肠道菌群检测而言,这种体系化管理尤为重要。作为 CNAS 认可的肠道菌群检测实验室,在检测过程中更强调全流程质控,包括阴性/阳性对照、空白对照、批次质控、污染监测、测序质量评估和异常样本复核等环节,尽量减少批次差异、背景污染和流程波动对结果的影响。
因此,选择肠道菌群检测机构时,除了关注报告内容,也应关注其实验室资质、质控体系、方法验证和结果解释边界。对于复杂的微生态检测来说,规范的实验室体系,是结果值得被认真参考的重要基础。
编辑
如果说肠道菌群检测报告的第一层壁垒
是把菌群谱测准、注释准、解释准;
那么第二层壁垒,
就是如何基于菌群数据
进行健康状态或疾病风险评估。
疾病风险评估不是“列几个特征菌”那么简单
疾病风险评估的基础,是菌群差异是否具有参考意义
目前许多肠道菌群报告中都会设置疾病风险或健康风险评估板块。其基础逻辑是:既然某些疾病人群与健康人群存在菌群差异,那么是否可以通过一个人的菌群特征,推测其更接近健康状态,还是更接近某类疾病相关状态?
这一部分往往也是消费者最关注、同时最容易被误解的内容。很多人拿到报告后,最先看的不是有哪些菌,而是自己有没有炎症风险、代谢风险、神经系统系统风险、肠易激风险、肥胖风险、糖尿病风险等。某种意义上,这也是肠道菌群检测最具应用价值的方向之一。
科研相关性,不等于个体预测能力
尽管大量研究已经证明,过去十多年,国内外已经发表了大量关于肠道菌群与结直肠癌、炎症性肠病、肠易激综合征、肥胖、2型糖尿病、脂肪肝、痛风、抑郁、阿尔茨海默病、自闭症谱系障碍等疾病相关性的研究。这些研究为菌群风险评估提供了重要的科学基础。
但是不同疾病人群、不同疾病阶段、干预前后、治疗响应与不响应人群,往往会呈现出不同的菌群结构和功能特征。
文献差异菌不能直接等同于个体健康风险判断
科研队列和真实检测人群,并不是同一回事
这是行业中一个非常关键、但常被忽略的问题。
科研研究通常会有严格的入组标准。例如,研究者会尽量控制年龄、性别、地区、饮食、BMI、用药史、抗生素使用、基础疾病、采样时间等因素。有些研究会要求受试者在一定时间内不能使用抗生素、益生菌、泻药或特殊药物;有些研究会限制饮食;有些研究会排除合并多种疾病的人群。这样做的目的是尽量减少干扰因素,突出某个疾病与菌群之间的关系。
真实世界中的菌群影响因素更加复杂
真实检测人群:
每一个因素都可能影响肠道菌群。
文献中的差异菌,不能简单搬进报告
在严格科研队列中得到的差异菌,未必能稳定适用于现实世界中的普通检测人群。把文献中的几个特征菌简单搬进报告,用它们来判断疾病高低风险,往往是不可靠,甚至可能完全错误误导后端干预。
★ 好的风险评估模型——核心不仅是算法,更需要高质量的样本数据
很多人在谈疾病预测模型时,容易把重点放在算法上,比如机器学习、随机森林、支持向量机、神经网络、深度学习等。算法当然重要,但在肠道菌群风险评估中,更基础、更关键的因素其实是:模型训练所使用的样本质量和样本代表性。
一个模型能不能识别真实世界中的疾病相关菌群特征,首先取决于它“见过”多少真实、准确、复杂且有代表性的样本。
这里至少包括几个核心问题。
第一,样本是否涵盖了各类人群
肠道菌群受到饮食习惯、地域环境、生活方式、遗传背景、医疗体系、药物使用习惯等多种因素影响。
不同地区和生活方式的人群肠道菌群基线并不完全相同。因此,如果一个模型应尽可能涵盖足够多样的人群,否则可能会出现适配性不足的问题。
第二,样本信息是否准确
疾病状态必须有明确依据,不能只靠用户自述。比如结直肠癌样本最好有病理、肠镜或临床诊断信息支持;糖尿病样本应有血糖、糖化血红蛋白等指标;炎症性肠病应有内镜、病理、临床诊断和疾病活动度信息。
如果标签本身不准确,模型学到的就可能是噪音,而不是真实疾病特征。
第三,样本量是否足够
肠道菌群个体差异极大,同一种疾病在不同阶段、不同用药、不同饮食、不同年龄人群中可能表现出不同菌群特征。
如果样本量太小,模型容易只学到某个小队列的偶然差异,而不是疾病本身在真实世界中的稳定信号。
第四,样本是否覆盖疾病发生、发展、治疗和干预过程
很多疾病不是单一状态。例如:
一个有应用价值的模型,应尽量覆盖这些复杂状态,而不是只比较“健康人”和“典型患者”。
第五,是否有严格的验证
模型不能只在训练数据上表现好,还要在独立测试集、外部队列、不同批次样本、不同时间段样本中验证。否则就可能存在过拟合:在原始研究数据里准确率很高,一到真实用户样本中就失效。
所以,尽管现在有 AI 的出现,如果没有足够大、具有代表性、并且样本数据清晰规范的本土人群数据库,那么疾病预测仍然会面临明显局限。
因此疾病的预测疾病风险评估板块真正的壁垒,不是报告上能不能写出“风险高、中、低”,而是背后有没有足够优质、真实、可追溯、经过验证的人群样本库和模型体系。
除了样本数据本身,风险评估模型还要解决另一个关键问题:它究竟在识别什么。
★ 好的风险评估模型——不是盯着几个菌,而是理解整体微生态特征
模型要识别的是整体,不是单个菌
很多人理解菌群风险评估时,会以为模型就是看某几个菌:会把它想象成一个简单的对应关系:某个“有害菌”升高,风险就升高;某个“有益菌”降低,风险就升高。这样的理解直观,但并不准确。
编辑
肠道微生态是一个复杂网络。疾病相关信号是由多种菌之间的组合关系、相对丰度变化、低丰度关键菌、菌群多样性、生态位变化、代谢功能、炎症相关通路、毒力因子、胆汁酸代谢、短链脂肪酸生成能力等共同构成。
因此,一个成熟模型不应只依赖少数几个肉眼可见的“明星菌”。它需要从整体菌群结构中学习复杂模式。
有些风险信号,甚至高于菌群丰度和关系
某些样本看起来有害菌并不高,多样性也不错,常规菌群构成似乎比较理想,但仍可能隐藏着与特定疾病相关的微生态模式。
这些信号可能来自低丰度菌群,也可能来自菌群之间的组合关系,甚至来自报告正文中没有逐一展示的菌种或功能特征。
以结直肠癌风险评估为例
已有大量研究显示,结直肠癌患者的肠道菌群中可能存在一些相对稳定的特征变化,例如部分具核梭杆菌、脆弱拟杆菌相关毒素型菌株、消化链球菌、微小单胞菌、产毒或促炎相关菌群变化等。
但在真实人群中,不能简单用某一个菌是否升高来判断风险。因为不同个体、不同阶段、不同治疗状态下,菌群表现可能并不一致。
有些人可能某个典型菌升高明显,有些人则可能表现为多个菌群组合的轻度偏移,或者表现为功能通路层面的异常。
如果一个模型基于足够大的真实世界队列,例如大量经临床确认的结直肠癌样本,并结合健康对照、肠道疾病对照、不同年龄和不同干扰因素样本进行训练与验证,它就更有机会学习到疾病相关的综合微生态模式,而不只是机械地识别几个特征菌。
这样更有利它在实战中去判别,比如整体结构是否更接近经临床确认的疾病相关样本。这类模型在实际应用中,才更可能对复杂样本保持较好的敏感性和特异性。
风险提示不能替代临床诊断
当然,即使模型表现较好,也应坚持一个边界:菌群风险评估结果只能提示“需要关注”或“建议进一步检查”,不能直接等同于诊断。比如结直肠癌中高风险提示,应建议结合年龄、家族史、症状、粪便隐血、肠镜等医学检查进行确认,而不是仅凭菌群报告下结论。
为什么“什么疾病都能预测”的报告反而要谨慎看待?
风险评估项目越多,不一定代表报告越成熟
消费者需要特别注意一个现象:有些菌群检测报告看起来功能非常丰富,几乎什么疾病都能评估,几十种甚至上百种风险都能给出结论。表面上看,这样的报告似乎更全面,但从专业角度看,反而需要谨慎。
原因很简单:不是所有疾病都已经具备成熟、稳定、可用于真实人群评估的菌群模型基础。
不同疾病的菌群证据基础并不相同
有些疾病与肠道菌群之间的关联证据较强,样本积累较多,模型开发和验证相对更有基础。
但有些疾病目前仍处于早期研究阶段,文献结果不一致,队列样本较少,混杂因素很多,尚不足以支持面向消费者的风险预测。
明确的风险结论,需要透明的模型依据
如果一个报告对很多疾病都给出非常明确的高低风险判断,但没有说明模型来源、样本量、适用人群、验证结果和解释边界,那么它很可能不是基于真实世界大样本模型,而只是引用了文献中报道过的一些差异菌或相关菌。
这种做法的问题在于:文献中的差异菌通常来自特定研究条件下的特定队列。它们可以作为科学线索,但不一定能直接作为个体风险判断依据。
如果把多个疾病文献中的特征菌简单叠加,就可能导致很多用户在报告中同时出现多种疾病高风险。这样的结果看似敏感,实际上特异性可能很差,容易造成不必要的焦虑,也可能误导后续干预方向。
专业,是对边界的克制
专业的做法应该是:
消费者应该如何理解这一板块
对于消费者而言,看到菌群报告中的疾病风险评估,既不必恐慌,也不能完全忽视。
比较合理的态度是:把它作为一种基于肠道微生态数据的健康风险提示。
如果某项风险偏高:
低风险不等于绝对没有问题,高风险也不等于已经患病。
菌群模型评估的是一种微生态模式与疾病状态的相似性或相关风险,它的意义在于帮助人们更早关注潜在问题,并为进一步检查、生活方式调整和健康管理提供参考。
行业应该比拼证据深度,而不是报告项目数量
肠道菌群检测进入应用阶段后,报告内容越来越丰富是趋势。有价值的竞争,不应该是谁能写出更多疾病名称,而是谁能在每一个评估项目背后建立更扎实的证据链。
一个负责任,科学,公平的检测体系(CNAS认可实验室的准则),应该敢于承认边界:
这样的报告看起来可能没有那么包罗万象,但专业价值反而更高。
从风险评估的实际价值来看,报告项目的数量并不是唯一衡量标准。相比覆盖多少病种,更值得关注的是:每一项提示是否有清晰依据,是否能提供合理的下一步建议,是否有助于减少误判、过度解读或不必要的干预。
总体来看,肠道菌群疾病风险评估是一个很有前景、也很有技术壁垒的方向。更值得关注的是,从科研发现走向真实世界应用,可能需要跨过样本质量、样本规模、模型验证、本土适配、混杂因素控制和临床解释边界等多道门槛。
这才是肠道菌群检测报告第二层壁垒的核心。
在肠道菌群检测报告中,
除了菌群谱和疾病风险评估之外,
第三个越来越重要的板块,
就是营养代谢与功能评估。
肠道菌群报告的第三层壁垒:营养代谢评估=看菌推营养?
很多报告会提示维生素合成能力、氨基酸代谢、短链脂肪酸生成能力、胆汁酸代谢、脂质代谢、膳食纤维利用能力、蛋白质发酵倾向、肠道屏障相关功能等内容。
这一方向是有大量询证依据的,而且这一块菌群有着绝对的优势,会做的越来越好。因为肠道菌群并不是被动存在于肠道里的“微生物名单”,它们本身就是一个活跃的代谢器官。
大量研究已经证明,肠道菌群参与膳食纤维发酵、短链脂肪酸生成、B族维生素合成、氨基酸代谢、胆汁酸转化、色氨酸代谢、胆碱和肉碱代谢、植物多酚转化等过程。这些代谢活动与能量利用、肠道屏障、免疫调节、炎症状态、神经递质前体、血糖血脂代谢等都有密切关系。
因此,通过菌群数据去评估一部分营养代谢能力,是有科学基础的。但这里必须强调一个关键点:菌群报告中的营养代谢评估,更合理的解释评估的是菌群相关代谢潜力或菌群功能倾向。
有价值的营养评估,看三组数据如何互相校准?(谷禾的菌群营养评估结合三组数据开发)
注:谷禾的菌群营养评估结合的三组数据是指:肠道菌群数据、粪便代谢组数据、血浆代谢组数据。
更高质量的肠道菌群营养代谢评估,不应只停留在“某个菌多,所以某种营养代谢好”这种层面,而应该尝试建立菌群、粪便代谢物、血液代谢物和饮食信息之间的对应关系。
这里面至少有三类重要关系。
第一,菌群功能潜力与粪便代谢物是否一致
比如报告提示丁酸产生菌不足,同时粪便中丁酸水平也偏低,那么可以更有信心地判断肠道短链脂肪酸生成环境不足。
反之,如果丁酸产生菌不低,但粪便丁酸低,就要考虑饮食纤维摄入不足、吸收增加、样本时间点或检测差异等因素。
第二,粪便代谢物与血液代谢物是否一致
例如肠道蛋白质腐败发酵增强时,粪便中某些酚类、吲哚类、胺类代谢物可能升高;其中部分代谢物如果进入血液并进一步影响宿主代谢,血液中也可能出现相关变化。但如果只在粪便中高、血液中不高,临床意义就可能不同,更多提示局部肠腔环境变化。
第三,菌群代谢能力与宿主营养状态是否一致
比如菌群提示B族维生素合成潜力较弱,但血液中相关维生素指标正常,可能说明饮食摄入或补充剂足够;如果菌群功能弱、饮食摄入不足、血液指标也偏低,那么营养干预的依据就更充分。
这种多组学和临床营养指标的互相验证,才是营养代谢评估真正走向成熟的方向。
营养代谢评估的专业价值,在于指导方向而不是替代临床营养诊断
肠道菌群营养代谢评估真正有价值的地方,是帮助我们理解一个人的肠道生态更偏向哪种代谢模式。
这些信息对个性化营养干预很有帮助。但它的正确定位应该是:为饮食结构优化、营养补充策略、肠道微生态干预和后续检测提供依据,而不是直接诊断某种营养缺乏或疾病。
第三层壁垒的核心:从“菌有什么功能”走向“功能是否真正影响宿主”
总结来说,肠道菌群报告中的营养代谢评估,是一个有科学依据、也很有应用潜力的方向。
但它的技术门槛并不低。
因此,营养代谢板块不是报告中“锦上添花”的装饰内容,而是检验一个菌群检测体系是否真正理解肠道微生态功能的重要部分。
专业的报告可以告诉用户:你的肠道菌群具备怎样的代谢倾向,这种倾向与饮食、粪便代谢物、血液营养指标之间是否一致,以及下一步应如何更科学地验证和干预。
对消费者而言,最重要的是记住一句话:肠道菌群可以帮助评估营养代谢环境,但不能单独定义人体营养状态。
为什么第一次/基线检测 尤其重要?
第一次基线肠道菌群检测的价值:建立可靠参照系以指导后续干预策略。
很多健康指标可以多次检测后再建立趋势,但肠道菌群的首次检测有特殊意义。因为一旦开始系统干预,原始状态可能很难再被还原。
长期服用益生菌、使用抗生素、改变饮食结构、接受粪菌移植或重大疾病治疗后,菌群生态可能发生持续改变。此时再检测,只能反映干预后的状态,而无法回答“我本来是什么样”。
因此,第一次基线检测,可以为后续观察和比较提供一个重要参照。
编辑
第一次基线检测就像一张干预前照片
它不一定完美,也不代表永久状态,但可以记录个体在某一时间点的肠道菌群结构特征和一定程度的功能潜力,呈现当时的微生态背景。
比如菌群多样性和稳定性如何,优势菌群结构是否与年龄、地域、饮食和健康状态大致匹配,是否存在明显偏离常见健康人群范围的模式,短链脂肪酸产生菌、黏液层相关菌、蛋白发酵相关菌、潜在条件致病菌、炎症相关菌群等是否处于值得关注的水平。
为后续观察、干预和复测提供参照
如果一个人未来出现症状变化、接受抗生素治疗、长期腹泻或便秘、体重快速变化、慢病治疗、营养干预或粪菌相关治疗,基线数据可以帮助判断菌群变化的幅度和方向。
对于科研和临床随访而言,基线更是分析因果链条和干预效果的基础。
在商业场景中,忽视基线会带来明显问题
机构可能先通过报告制造异常,再推荐干预,然后用干预后某些指标变化证明产品有效。但如果没有真实干预前基线、没有对照、没有标准化采样和统计分析,这种“前后对比”很容易受到自然波动、饮食变化、检测误差和选择性展示影响。
科学的基线检测应当先于干预,并尽量独立于产品销售。
为什么后端干预前必须重视基线?
干预越强,越需要先看清原始状态
肠道菌群相关干预包括饮食调整、膳食纤维增加、益生菌补充、益生元补充、合生元、后生元、抗生素使用、药物治疗、运动和睡眠改善,甚至粪菌移植等。
这些干预方式的强度差异很大,潜在影响也不同。一般来说,干预越强,越需要在干预前获得可靠基线。否则,后续干预就像在没有地图的情况下改变一个复杂生态系统:既不知道哪里真正需要调整,也很难判断调整后是否真的变好了。
没有基线,容易把正常差异误判为异常
举例来说,一个人检测前长期高纤维饮食,短链脂肪酸产生菌丰富,菌群多样性较好,Akkermansia、Faecalibacterium、Roseburia 等相关菌群处于适宜范围。
但如果采用了不适配的人群参考值,或者用过于简单的评分体系判断其“菌群低分”“缺乏益生菌”,就可能引导其进行并不必要的补充。几个月后,即使检测指标发生变化,也很难判断这种变化是否真的有益;如果症状没有改善,还可能进一步造成误解甚至过度干预。
警惕“检测—焦虑—购买”的闭环
再如,一个人原本并无明显肠道疾病风险,只是因为看到“菌群年轻化”“提升免疫力”等广告接受检测。
若报告故意调高某些“有益菌”参考阈值,使多数人看起来不达标,再配套推荐产品,就容易形成“检测—焦虑—购买”的闭环。此时检测不是科学评估,而是销售脚本的一部分。
高强度干预尤其不能只凭单次商业检测决定
还有更需要谨慎的例子是粪菌移植。粪菌移植在复发性艰难梭菌感染等特定疾病中已有较明确证据,但在广泛大健康、减重、美容、抗衰、情绪改善等场景中仍需严格限定适应证和风险评估。
如果一个人原本菌群分值不错、没有明确临床适应证,却因为错误参考范围或夸大解读而接受粪菌移植,可能破坏自身已有土著菌群生态,引入不可预测的微生物和代谢风险。粪菌移植不是普通保健项目,更不能成为基于单次商业检测结果的轻率选择。
基线的作用,是为干预设置目标和边界
首次基线检测可以在这些场景中发挥“刹车”和“参照”作用。
它让个体和专业人员知道:
因此,基线检测不是为了让所有人都进入干预流程,而是为了让干预更有依据、更有边界,也更容易被客观评估。
编辑
肠道菌群不是越多越好,也不是某个明星菌越高越好
“好菌越多、坏菌越少”是一种过度简化
市场宣传中常见一种简单化表达:某种菌是“好菌”,越多越好;某种菌是“坏菌”,越少越好。这样的说法便于传播,却容易误导。
肠道菌群是生态系统,不是单一成分表。许多细菌的意义取决于菌株水平、宿主背景、整体生态位置和代谢环境。
“明星菌”也不能脱离整体生态判断
即便是被广泛关注的有益相关菌,也不意味着所有人都需要补充或越多越健康。
以 Akkermansia muciniphila 为例,它常被称为黏蛋白降解菌,与肠黏液层代谢、代谢健康等研究方向相关。
在一些研究中,Akkermansia 的相对丰度与代谢指标改善相关,因此成为商业宣传中的“明星菌”。但这并不代表每个人都需要人为提高它,更不代表它越高越好。
若一个人的 Akkermansia 已经处在较高水平,同时整体菌群多样性良好、肠道症状不明显、炎症相关指标无异常,盲目追求进一步提升并没有充分科学依据。更极端地说,如果只看某一项指标而忽视整体生态,可能对个体产生错误引导。
乳酸菌、双歧杆菌也不是人人都要长期补充
同样,乳酸菌、双歧杆菌等常被公众理解为绝对“好菌”。但成人肠道中双歧杆菌丰度受年龄、饮食、地域和个体差异影响很大。
某些乳酸菌产品也可能并不长期定植,更多是短期代谢或免疫调节作用。对于一个本身菌群结构较好的人,长期、重复、大剂量补充多个益生菌产品,不一定带来额外收益,反而可能造成检测解释混乱、症状波动或经济负担。
条件致病菌也不能简单理解为“检出就是有病”
许多潜在致病菌或机会致病菌可以低丰度存在于健康人群中。判断其意义需要结合丰度、毒力基因、宿主症状、炎症指标、免疫状态和临床背景。将“检出某菌”直接等同于“感染”或“需要治疗”,是不严谨的。
因此,首次基线检测的一个重要作用,是帮助个体认识自己的菌群是在整体生态中呈现怎样的状态,而不是被单一明星菌或单项异常牵着走。
报告解读应坚持科学、克制和个体化
肠道菌群报告的难点不在于列出菌名,而在于解释。解释过少,用户看不懂;解释过度,又容易造成误导。
科学解读应坚持三个原则:基于证据、结合背景、承认不确定性。
基于证据:不能把相关性直接说成诊断结论
基于证据,意味着不能把单篇研究、动物实验或体外实验直接转化为个人诊断。许多菌群与疾病之间是相关关系,不一定是因果关系。即使某菌在某疾病患者中平均升高,也不代表某个健康人该菌升高就会发病。
结合背景:同一个结果,在不同人身上意义不同
结合背景,意味着要询问或记录受检者的年龄、饮食、排便、近期药物、疾病史和干预史。
承认不确定性,意味着报告要说明检测边界
粪便菌群主要反映肠腔和脱落菌群,还有部分肠黏膜菌群;DNA 检测不能区分活菌和死菌;相对丰度受其他菌变化影响,不等同于绝对数量;一次检测不能反映长期趋势;菌群功能潜力不等同于实时功能表达。
合理管理建议
个体化并不等于无限定制产品,而是基于个人基线和背景提出合理建议。
对于大多数人,最基础、证据更稳健的建议仍然是:增加多样化植物性食物,保证足够膳食纤维,减少长期高油高糖高加工食品,规律作息,适量运动,避免不必要抗生素,出现持续症状时及时就医。
肠道菌群检测在大健康领域的合理定位
在大健康领域,肠道菌群检测最适合扮演三个角色:教育工具、风险提示工具、随访比较工具。
作为教育工具,它可以让人更直观地理解饮食、药物、生活方式与肠道生态的关系。很多人在看到自己膳食纤维相关菌群不足后,更容易接受增加植物性食物的建议。
作为风险提示工具,它可以发现一些值得关注的模式,例如多样性明显降低、机会致病菌显著升高、产丁酸菌群不足、蛋白发酵相关特征突出等。但这些提示需要结合临床和生活背景,不应直接转化为疾病诊断。
作为随访比较工具,它可以用于观察干预前后趋势。尤其当同一实验室、同一方法、相似采样条件下多次检测时,纵向比较往往比不同机构之间横向比较更有意义。
行业规范化需要哪些努力?
肠道菌群检测行业要健康发展,需要从多个层面提升规范性。
编辑
实验室层面
应建立标准化采样、运输、DNA 提取、建库测序、生信分析和报告审核流程,持续进行质控和能力验证。对于关键性能指标,如重复性、检出限、批间差、污染控制、注释准确性等,应有内部验证和记录。
数据库层面
应建设大规模、本土化、结构化、可追溯的人群数据库,并对不同年龄、地域、性别、饮食和健康状态进行分层。数据库建设除了追求样本数量外,还应重视元数据质量。
模型层面
应提高透明度和可验证性。健康评分、风险模型和推荐算法应避免黑箱化,至少应在报告或技术说明中解释基本逻辑、适用范围和局限性。
报告层面
应使用审慎语言,区分科研关联、健康参考和临床诊断。报告不应夸大,不应制造焦虑,不应将所有偏离都导向产品购买。
监管和行业共识层面
需要推动术语标准、质控标准、参考数据库建设规范、报告表达规范和商业宣传边界。肠道菌群检测的发展前景不应建立在短期销售上,而应建立在科学可信和长期复测价值上。
肠道菌群检测的价值,既不宜被过度放大,也不应被简单忽视。它不能替代临床诊断,也不能仅凭一次检测就判断一个人的整体健康状况,更不应成为商业干预的唯一依据。不过,如果建立在规范实验室、严格质量控制、较大规模本土数据库以及专业解读的基础上,它仍然可以为个体了解自身微生态状况提供一定参考。
首次基线检测的意义,正在于记录个体在干预前相对原始的微生态状态。无论是后续的饮食调整、药物使用、益生菌补充,还是疾病治疗和健康管理,都需要一个可比较的起点。没有基线,很多个体化建议就缺少参照;没有客观数据库和质量体系,报告中的分数也容易失去实际意义;如果缺少科学边界,检测还可能在无形中增加不必要的健康焦虑。
因此,真正有价值的肠道菌群检测,更应该:
当行业更加重视科学依据、质量控制和长期随访,肠道菌群检测才有可能在大健康和精准健康管理中发挥更稳健的作用。对个体而言,报告上的某个分数并不是最重要的,真正值得保留和关注的,是基于真实基线建立起来的、长期可比较的微生态参考。
新一代肠道菌群检测将不止着眼于肠道菌群的构成和变化,而是和其他组学数据一起绘制全面的人体健康数字画像,借助海量的样本和多维度的高通量数据来揭示纷繁复杂的健康状况。
通过将肠道菌群和粪便代谢组、血浆代谢组、蛋白组、血液检测、临床记录和生活问卷等这些不同维度的数据在隐空间进行对齐,彻底释放肠道菌群中蕴含的丰富健康信息,也将让我们更加了解肠道菌群的真实边界。
也许肠道菌群能告诉我们的比我们自己了解的要多得多,只是这一切都要用真实可靠的海量数据来构建。谷禾正在构建庞大的队列数据集,推动肠道菌群的研究和应用向全新的领域前进,迎来属于肠道菌群的chatGPT时刻。
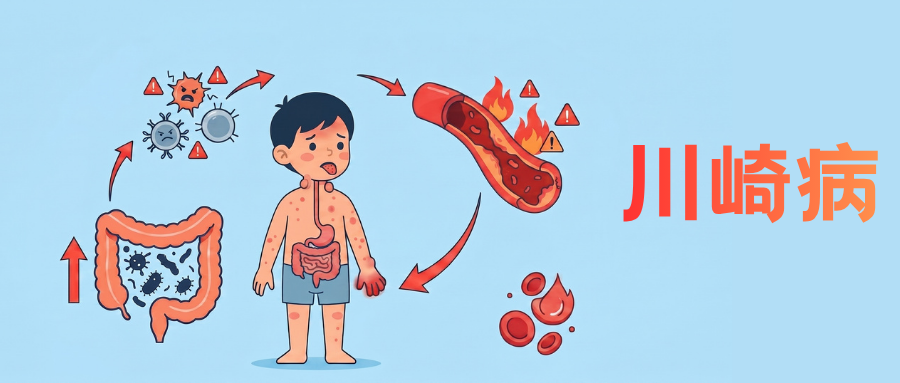
谷禾健康
川崎病 (KD) 是一种急性、免疫介导的血管炎,也是儿童获得性心脏病的主要原因。其最早由日本儿科医生川崎富作于1967年首次报告,此后全球六十多个国家相继发现病例。尽管临床诊治水平不断进步,但川崎病的病因至今仍未完全阐明。它不像普通感染那样有明确的病原体,也不像自身免疫病那样有清晰的自身抗体——它更像是一个由遗传易感性、环境触发因素和免疫异常反应共同编织的复杂谜团。而正是这种复杂性,使得川崎病在诊断、治疗和预后管理上始终面临诸多挑战。
更令人忧心的是,川崎病对儿童心脏的危害常被低估。若不及时治疗,约25%的患儿会出现冠状动脉异常,包括冠状动脉扩张和冠状动脉瘤,严重者可导致心肌缺血甚至心肌梗死。即使急性期症状消退,曾经出现冠状动脉损伤的患儿仍需长期甚至终身的心脏随访。这意味着,幼年一次发病,可能对其一生的心血管健康造成深远影响。
近年来,一个长期被忽视却逐渐浮出水面的关键角色——肠道菌群,正为理解川崎病发病机制提供新视角。研究显示,川崎病患儿急性期常出现明显菌群失衡:产短链脂肪酸的有益菌减少,条件致病菌增多,肠道屏障受损,微生物产物入血并放大全身炎症反应。更重要的是,这种失衡不仅与疾病进展相关,还可能影响IVIG治疗反应和冠状动脉损伤风险。肠道菌群正从“旁观者”转变为川崎病发生发展的参与者和潜在干预靶点。
本文将系统梳理川崎病从基础认知到前沿探索的完整知识脉络,首先初步介绍了川崎病的定义、病理特征、流行病学特点及风险因素,帮助读者建立基础认知。
其次整理了现有传统的川崎病治疗方法,包括静脉注射免疫球蛋白(IVIg)联合阿司匹林、糖皮质激素、IVIG抵抗补救方案及冠状动脉损伤后的抗栓治疗,呈现现有治疗的优势与局限。
然后揭示了患者肠道菌群失调的特征,短链脂肪酸不足、肠屏障受损、微生物产物易位与免疫炎症放大之间的关联,揭示其潜在致病机制。
最后,肠道微生物组作为川崎病的治疗靶点,将展望以微生态重塑为核心的干预新方向,从益生菌补充、益生元干预、粪菌移植到饮食调节,逐一分析各类策略的作用机制、现有证据及临床转化前景,为川崎病的精准治疗开辟新的思路。
什么是川崎病?
川崎病是一种主要发生在儿童(尤其是5岁以下)的急性全身性血管炎。可以把它理解为:孩子的免疫系统“被错误激活”,去攻击自身血管(尤其是中等大小动脉)的一种炎症性疾病。
编辑
★其中最关键的一点是:
它最容易损伤“冠状动脉”(给心脏供血的血管),这也是为什么川崎病被认为是:儿童中最常见的获得性心脏病原因之一。
注:川崎病(KD)最早由日本儿科医生川崎富作于1967年发表报告。1970年,在对10例诊断为KD后突发性心脏死亡的尸检后,这些心脏后遗症被记录下来。日本以外首次报告的病例出现在1970年代初的夏威夷;此后,全球60多个国家相继报告了KD病例。
川崎病有哪些症状及危害?
川崎病的诊断目前主要依赖临床表现,其经典特征可以归纳为“一加五”模式。
✅ 必备条件
“一”是指必备条件——患者主要表现为持续5天以上的高热(体温一般在39~40℃),且抗生素治疗无效。这是所有川崎病患儿共同的核心表现。
✅ 常见五大表现(满足其中4条即可高度怀疑)
1.双侧结膜充血:眼睛红,但没有分泌物。
2.口腔和嘴唇改变:
-嘴唇干裂、发红;
-“草莓舌”(舌头红、乳头突起)。
3.皮疹:全身性、多样性皮疹。
4.四肢改变:
-手脚红肿;
-恢复期出现指尖脱皮。
5.颈部淋巴结肿大。
与川崎病相关的变化
编辑
doi: 10.1161/ATVBAHA.124.321201.
✅ 川崎症在不同阶段表现出不同症状
川崎症按病程可为四期,不同阶段会有不同的症状:
•Ⅰ期,急性期:通常病程≤10天,临床表现为发热、结膜充血、皮疹、口腔病变、淋巴结肿大。
•Ⅱ期,亚急性期:病程在12~28天,表现为烦躁、脱皮,心脏表现如心包积液、房室瓣返流、心力衰竭、冠状动脉瘤形成等。
•Ⅲ期,恢复早期:病程在第28~45天,上述各种临床表现逐渐消失。
•Ⅳ期,恢复晚期:数月~数年,患儿大多已恢复正常,部分伴有心脏病变,如心电图异常、心律失常、心脏扩大,甚至缺血性心肌病、心功能不全。
✅ 川崎症的长期危害也很大
然而,川崎病真正的威胁远不止于这些表面症状。最核心、最严重的危害在于冠状动脉损伤。如果不及时治疗,约25%的患儿会出现冠状动脉异常,包括冠状动脉扩张和冠状动脉瘤(CAA)。冠状动脉瘤一旦形成,可能导致心肌缺血,甚至引发心肌梗死。
是的,儿童同样可能发生心梗——并显著增加猝死风险。
除此之外,由于川崎病本质上是一种全身性血管炎,它还可能波及心脏本身(引起心肌炎、心包炎)、消化系统(导致腹痛、呕吐),以及少见的神经系统损伤。
更值得警惕的是,即使急性期症状消退,曾经出现冠状动脉损伤的患儿仍需要长期、甚至终身的心脏随访,以监测潜在的心血管并发症。
川崎病的流行病学
川崎病是一种全球分布但发病率差异极大的儿童血管炎。近年来呈现:
川崎病有非常明显的流行病学特征,包括以下几点:
(1)地区差异(显著特征)
川崎病在不同地区发病率差异极大(可相差数倍):
• 东亚地区(高发区):持续上升、并存在流行高峰。
• 北美与欧洲(中低发区):亚裔儿童发病率显著更高。
• 其他地区:非洲、南美报道较少,全球总体发病趋势正在被越来越多识别。
(2)人群分布特征
• 年龄分布(极其典型):80–90%发生于5岁以下儿童,高峰年龄为6个月~4岁。(<6个月少见(可能受母体抗体保护),5岁后也明显减少)
• 性别差异:男孩发病率高于女孩,比例约为1.5:1。
• 种族/遗传背景:高风险人群为日本人、韩国人、中国人等亚洲人及亚裔后代(无论居住地)。说明遗传易感性在发病中起核心作用。
(3)时间分布特征
• 明显的季节变化:高发季节为冬季和早春;晚夏和秋季病例较低。
• 流行波动:周期性流行高峰,类似病毒传播的“波浪式模式”。
川崎病的风险因素
川崎病的本质是免疫介导的全身性血管炎,其核心病理过程是免疫系统对冠状动脉等血管壁的异常攻击。这些特征并不是孤立的,它们共同指向一个核心结论:“感染触发 + 遗传易感 + 免疫异常”三者共同作用的结果。导致疾病发生的风险因素主要有以下几种:
(1)遗传易感性(最强风险因素)
该疾病存在一定的家族聚集现象,在部分家庭中可见多名成员先后发病。同时已发现多个相关的易感基因位点(SNP),提示遗传因素在发病中具有重要作用:
(2)年龄因素
高风险:6个月–5岁。
可能原因:免疫系统尚未成熟、初次暴露病原体。
(3)性别因素
男性风险更高
可能原因:
(4)感染暴露
可能相关:
(5)种族与地理因素
日本、韩国、中国等亚洲人群风险较高,即使迁移仍保持高风险。
(6)季节与环境因素
冬春高发
可能相关因素:
(7)肠道菌群失衡(新兴风险因素)
研究发现,川崎病患者中:
注:肠道菌群与川崎病的关联将在后文进一步详细阐述。
(8)免疫状态异常
包括:
这些因素都可能会影响川崎病的发生。
本章小结
综上所述,川崎病是一种以儿童为主的免疫介导性全身血管炎,核心在于对冠状动脉的损伤,严重时可导致冠状动脉瘤、心肌缺血甚至心肌梗死,是儿童获得性心脏病的重要原因之一。
该病具有明显的年龄集中性(多见于5岁以下)、性别差异(男多于女)、种族倾向(亚裔高发)及季节性与流行波动特点。综合现有研究,川崎病的发生可归因于感染触发、遗传易感与免疫异常三者共同作用,其中遗传背景、年龄、性别、感染暴露及环境因素等均为重要风险因素,近年来肠道菌群失衡也被认为可能参与其发病过程。
整体而言,川崎病是一种多因素共同驱动的复杂免疫相关疾病,其早期识别与干预对于预防严重心血管疾病后果至关重要。
川崎病作为一种病因尚未完全明确的儿童急性系统性血管炎,其核心特征是异常激活的免疫反应及由此引发的血管内皮损伤。然而,一个长期未被充分重视却逐渐浮出水面的关键问题是:这一过度炎症反应”究竟由何触发,又如何被持续放大?
近年来,随着检测技术和微生态研究的发展,肠道菌群逐渐被认为是连接环境因素与宿主免疫反应的重要桥梁。越来越多证据表明,川崎病患儿存在显著的肠道菌群失衡,这种改变不仅体现在菌群组成的重塑,更涉及代谢功能紊乱及免疫调控异常,并与疾病的炎症程度、冠状动脉损伤以及IVIG治疗反应密切相关。因此,肠道菌群很可能并非单纯的“旁观者”,而是在川崎病的发生、发展乃至预后过程中发挥着主动而复杂的调控作用。
肠道微生物组与川崎病之间的潜在关联
编辑
doi: 10.1080/17460913.2025.2469432.
基于此,深入探讨肠道菌群在川崎病中的具体作用机制,对于理解其发病本质并寻找新的干预靶点具有重要意义。
川崎病中的肠道微生物失调
急性期川崎病(KD)患儿普遍存在肠道菌群α-多样性(丰富度与均匀度)显著降低及菌群结构失衡,典型表现为”产短链脂肪酸有益菌减少,条件致病菌过度增殖“的双重偏移。
编辑
doi: 10.1161/ATVBAHA.124.321201.
(1)产丁酸盐的菌属普遍降低:
• Faecalibacterium(特别是 F. prausnitzii):肠道中最主要的产丁酸盐菌之一;许多研究均证实其在川崎病(KD)急性期显著下调。其减少导致抗炎能力下降、肠道屏障受损。
• Ruminococcus 与 Roseburia:均为重要的产丁酸菌,负责维持紧密连接蛋白表达并调节Treg/Th17平衡;Ruminococcus在急性期减少,非急性期可回升。
• Clostridium(能产SCFA的梭菌簇)和Blautia:同样被发现在急性期丰度降低。
(2)经典的益生菌和保护性菌群减少:
• Bifidobacterium(双歧杆菌)和 Lactobacillus(乳杆菌):这两种最典型的益生菌在急性期丰度下降,这削弱了肠道黏膜屏障的保护功能。
• Akkermansia muciniphila(阿克曼氏菌):显著减少,该菌负责分解肠道黏液层,它的减少意味着黏液层的更新和维护可能受阻,屏障功能受损。
• Bacteroides(拟杆菌属):整体丰度下降,特别是其中的 Bacteroides thetaiotaomicron、B.uniformis 和 B. ovatus 等产SCFA的菌种。
注:值得注意的是,B. thetaiotaomicron 的减少被发现与IVIG耐药及心脏并发症风险增加相关。
川崎病肠道微生物组组成及关键代谢产物
编辑
doi: 10.1007/s00431-026-07008-z.
(3)潜在致病菌和条件致病菌大量增殖:
与有益菌减少相对应,多种条件致病菌在川崎病急性期呈现过度富集,可能通过超抗原、毒力因子或促炎代谢产物加剧全身炎症:
• Enterococcus(肠球菌属,特别是E.faecalis):在几乎所有研究中都显示急性期显著增高,并且其丰度与体内炎症标志物白细胞介素-6(IL-6)的水平呈正相关。此外,它还被认为与IVIG耐药有关。
• Streptococcus(链球菌属):其多个菌种在急性期丰度升高,它们可能通过产生超抗原,非特异性地过度激活T细胞,从而引爆全身性的免疫风暴。
• Staphylococcus(葡萄球菌属)、Helicobacter(螺杆菌属)、Acinetobacter(不动杆菌属)的丰度也在急性期有所增加,共同加剧了炎症反应。
• Fusobacteria(梭杆菌属)和 Shigella(志贺氏菌属)也被发现与川崎病的发生有关。
肠道菌群相关代谢物的变化及影响
川崎病(KD)急性期最关键的代谢物改变是短链脂肪酸(尤其是丁酸盐)显著下降,其他代谢轴亦有变化。
(1)短链脂肪酸(SCFA)减少
变化趋势: 实测显示KD患儿粪便丁酸盐浓度显著降低,乙酸盐、丙酸盐、乳酸盐在部分研究中相近或轻度下降;动物模型(CAWS诱导)亦示三种SCFA均减少。
丁酸盐是结肠上皮细胞主要能量源,可上调Occludin/Claudin等紧密连接蛋白;促进CD4⁺FoxP3⁺ Treg分化、抑制Th17分化;抑制NLRP3炎症小体及NF-κB/MAPK通路。
川崎病中缺失丁酸盐会导致:
•Treg发育受阻 → Th17/Treg失衡偏向促炎方向;
•肠道通透性升高 → 微生物产物(LPS等)入血;
•巨噬细胞MKP-1下调 → MAPK通路持续活化 → TNF-α、IL-1β、IL-6升高 → 冠脉血管炎。
(2)其他潜在代谢变化
•LPS(脂多糖)易位增加: 因”肠漏”发生,革兰阴性菌LPS进入循环 → 经TLR4-MyD88激活下游炎症通路。
•胆汁酸代谢改变: 部分研究示胆酸代谢通路差异,阿司匹林可通过P. goldsteinii / 7-keto-LCA影响肠上皮修复,但KD中直接数据有限。
血清免疫球蛋白下降: KD急性期肠道来源IgA、IgG水平下降,提示肠黏膜免疫功能障碍,削弱对共生菌/致病菌的管控。
肠道菌群影响川崎病的具体机制
根据现有文献,肠道菌群影响川崎病的具体机制可概括如下:
①菌群失调与短链脂肪酸匮乏
遗传易感 + 早期环境(感染触发、抗生素暴露、喂养方式)→ 急性期川崎病特有菌群失调 → 产 SCFA 菌(Faecalibacterium、Roseburia 等)锐减 → 粪便丁酸盐等 SCFA ↓
②肠道屏障破坏
SCFA(尤其丁酸盐)不足 → 结肠上皮细胞能量危机 + 紧密连接蛋白(Occludin、Claudins、ZO-1)表达下调 + 黏蛋白层变薄(Akkermansia 少)→ 肠上皮通透性增加。
③微生物产物易位与免疫激活
肠道内条件致病菌超抗原(链球菌/金葡菌来源)或 脂多糖(LPS)穿越受损屏障入血/淋巴;
LPS → TLR4 → NF-κB/NLRP3 炎症小体激活;
超抗原 → 非特异性 TCR 交联(Vβ2⁺ T 细胞克隆扩增)→ 强烈T细胞活化。
肠道微生物群失调与川崎病的联系
编辑
doi.org/10.1038/s41592-025-02923-9
④系统性免疫放大:
在上述刺激下,机体进入持续的高炎症状态:
•IL-6、TNF-α、IL-1β、IFN-γ持续升高;
•中性粒细胞、单核/巨噬细胞被大量激活。
同时:
•炎症细胞从肠道相关淋巴组织(GALT)迁移至外周;
•形成全身免疫放大效应。
⑤血管内皮损伤
炎症因子作用下:
•ICAM-1、VCAM-1表达上调;
•内皮通透性增加;
促进炎症细胞黏附与浸润及内皮细胞激活。
此外,中性粒细胞早期浸润、巨噬细胞、T细胞持续参与,会导致中小动脉全层炎症。
传统川崎病疗法与肠道菌群间的联系
(1)静脉注射免疫球蛋白能帮助菌群复衡
多数研究显示 IVIG (静脉注射免疫球蛋白)治疗后,有益菌(Bifidobacterium、Lactobacillus、Roseburia、Bacteroides vulgatus)部分恢复,条件致病菌(Finegoldia、Enterococcus)下降,SCFA 合成通路上调——提示 IVIG 可能间接帮助菌群复衡,或菌群稳态影响 IVIG 疗效(Bacteroides thetaiotaomicron 低、E. faecalis 高与 IVIG 耐药相关)。
(2)阿司匹林也会影响菌群丰度和短链脂肪酸
尚无 KD 患儿直接数据;其他模型显示阿司匹林可改变菌群丰度(升 高Bifidobacterium、Lactobacillus、降低Fusobacterium、Enterococcus),在临床前研究中,阿司匹林给药降低了厚壁菌门与拟杆菌门 (F/B) 的比率并增加了特异性 SCFA 。
但长期/高剂量可致轻微胃肠黏膜损伤,推测在 KD 中可能参与微调菌群—需进一步验证。
(3)糖皮质激素会降低菌群多样性
动物/其他病种研究显示长期糖皮质激素(GC)降低菌群多样性、改变短链脂肪酸产生菌;但川崎病中GC作为补救/辅助治疗与菌群交互尚不明确。
(4)抗生素暴露可能增加川崎病风险
回顾性研究显示生命早期(<6~12 月)抗生素使用与 KD 发病风险增加相关——抗生素破坏婴幼儿菌群建立,可能导致 SCFA 产生菌定植不足,构成 KD 易感背景。
本章小结
川崎病表现出典型的肠道菌群失调特征,即短链脂肪酸(SCFA)产生菌减少而条件致病菌增加,进而导致丁酸盐等抗炎代谢物不足,肠道屏障受损及通透性升高,促进微生物产物入血,并诱导Th17/Treg免疫失衡,最终放大全身炎症反应并加重冠状动脉损伤。
另一方面,标准治疗手段,尤其是静脉注射免疫球蛋白(IVIG),在一定程度上可促进肠道菌群结构的恢复与重建,而早期不合理或过度使用抗生素则可能进一步推动易感性菌群的异常偏移,加剧菌群失衡状态。
川崎病作为一种以全身性血管炎为特征的儿童疾病,其治疗策略始终围绕炎症控制与心血管保护展开。随着临床研究的不断深入,已逐步形成较为规范的传统治疗体系,并在降低严重并发症方面取得显著成效。
然而,在实际临床应用中,不同患儿的治疗反应及预后仍存在一定差异,提示该领域仍具有进一步优化与发展的空间。基于此,有必要对当前传统治疗方法及其特点进行系统梳理与分析。
1
静脉注射免疫球蛋白(IVIg)
适用对象:所有确诊或高度疑似川崎病患儿,争取在发热 ≤10 天内治疗。
川崎病最核心、最关键治疗,所有指南一致推荐。
✔优点:
•显著降低冠状动脉损伤:从15–25%下降至3–5%;
•起效快:多数患儿在24–48小时内退热;
•广谱免疫调节作用:抑制炎症因子(IL-1、TNF-α等)、调节T细胞、B细胞功能;
•安全性总体较好(临床经验丰富)。
✘局限性与缺点:
•约10%–20%患者无反应(IVIg-resistant),此类患者冠脉瘤风险显著升高;
•输注相关不良反应:发热、寒战、皮疹、过敏性休克(罕见);快速输注增加风险。
•作用机制尚未完全阐明(推测为 Fc 受体阻断、细胞因子中和、病原体特异性抗体)。
•费用高、资源依赖强:成本较高、依赖血制品供应。
2
阿司匹林(Aspirin)
阿司匹林是治疗川崎病儿童的关键药物。中剂量阿司匹林(30~50 mg/kg/天)在急性期发挥抗炎作用,而小剂量阿司匹林(3~5 mg/kg/天)在亚急性期发挥抗血小板作用,从而预防冠状动脉血栓形成。
✔优点:
•抗炎(高剂量)及抗血小板(低剂量)双重作用,符合 KD 急性期炎症 + 高凝状态病理生理;
•使用方便、成本低;
•在预防血栓方面作用明确。
✘局限性与缺点:
•高剂量时可能引起胃肠道刺激、Reye 综合征风险(尤其在病毒感染如流感/水痘时需暂停);
•出血风险(尤其联用其他抗凝药时);需根据肝功能、尿酸调整;
•不同国家对高剂量持续时间(至退热48h vs 至病程第14天)尚无统一标准。
3
糖皮质激素—联合辅助治疗
适用对象:经Kobayashi或Egami评分判定的IVIg 耐药高危患者,非高危者不常规推荐。
✔优点:
•强效抗炎作用;
•对IVIG抵抗患者有效;
•可缩短发热时间(部分研究支持)。
✘局限性与缺点:
•对冠状动脉保护作用不一致;
•可能存在副作用:包括免疫抑制、血糖升高、感染风险增加;
•使用时机存在争议:是早期联合用?还是仅用于难治?
4
IVIG抵抗病例的治疗
定义:首剂静脉注射免疫球蛋白(IVIg)(2g/kg)后≥36h 仍发热(≥38℃)且 CRP 未降。
(1)第2剂(或第3剂)IVIg
用法:再次给予2g/kg IVIg,品牌通常不变。
(2)静脉甲泼尼龙脉冲
用法:30mg/kg/日×1–3天(多在二次 IVIg 失败后),可续以口服激素逐渐减量。
(3)英夫利昔单抗(Infliximab,抗TNF-α)
用法:单次5mg/kg 静滴(通常在 1 剂 IVIg 无反应且考虑二次 IVIg 替代/联用时)。
(4)环孢素 A(Cyclosporine A)
用法:4–6 mg/kg/日分两次,根据血药浓度调整(谷值 60–200 ng/mL 或按中心方案),用至退热+CRP 正常,最长 2–3 周。
(5)低剂量甲氨蝶呤(极少用)
用法:10 mg/m² 每周口服,至 CRP 正常。
5
冠状动脉损伤后的抗栓治疗
本章小结
传统川崎病治疗以静脉注射免疫球蛋白(IVIG)联合阿司匹林为核心,该方案显著降低了冠状动脉并发症的发生率,是当前临床标准治疗。然而,该治疗体系仍存在一定局限性,包括约10%–20%的IVIG抵抗、对冠状动脉损伤预防不完全、治疗缺乏靶向性以及个体化管理不足等问题。
对于难治性病例,虽可采用重复IVIG、糖皮质激素及其他免疫调节治疗,但其疗效与长期获益仍存在争议。此外,抗血栓治疗及长期随访虽有助于降低严重心血管事件风险,但也增加了治疗复杂性与患者负担。总体而言,传统治疗虽显著改善预后,但仍有进一步优化和精准化发展的空间。
随着肠道微生物组在川崎病发生发展中的关键调控作用逐渐被揭示,其已从“相关因素”转变为具有潜在干预价值的治疗靶点。
当前研究表明,肠道菌群不仅参与炎症放大和免疫失衡过程,还可能影响静脉注射免疫球蛋白(IVIg)治疗反应及冠状动脉病变风险。因此,围绕微生态重塑的干预策略,正逐渐成为川崎病治疗领域的研究热点。这类策略旨在恢复菌群稳态、重建肠屏障功能并调节免疫反应,从而为传统治疗提供有益补充,并为改善预后开辟新的方向。
肠道微生物组的川崎病治疗干预措施
编辑
doi: 10.1007/s00431-026-07008-z.
益生菌帮助改善川崎病
益生菌对于调节肠道微生物群、提高整体免疫力、增加有益细菌丰度以及减轻与许多疾病相关的症状至关重要。
✅ 补充A.muciniphila减轻川崎病血管炎严重程度
在临床前模型中,研究已证实口服补充巴氏灭菌或活性的 A. muciniphila及 F. prausnitzii可减轻川崎病小鼠血管炎严重程度;类似地,口服巴氏灭菌的 A. muciniphila 或其外膜蛋白 Amuc_1100 亦具有保护作用。
其潜在机制可能与增强肠道紧密连接表达、降低全身免疫反应及增厚肠道黏液层有关。
✅ 补充丁酸梭菌降低炎症因子减轻冠状动脉病变
短链脂肪酸的产生源于膳食成分与肠腔内肠道微生物群之间复杂的相互作用。已证明在川崎病小鼠模型中给予丁酸梭菌可显著提高产生 SCFA 的细菌的流行率,并通过降低炎症标志物 IL-1β 和 IL-6 的水平来减轻冠状动脉病变 (CAL)的发展。
这为益生菌(丁酸梭菌)及其代谢产物补充剂(SCFA)调节川崎病患者肠道微生态提供了新的见解。
产生短链脂肪酸细菌对心血管疾病的影响
编辑
doi: 10.1161/ATVBAHA.124.321201.
多摄入益生元
益生元是不可消化的膳食纤维,可选择性刺激有益肠道微生物群的增殖并促进短链脂肪酸的合成。在成人临床研究中,一项临床试验表明,富含乙酰化和丁酰化淀粉的饮食可通过增加产生 SCFA 的细菌数量并提高循环乙酸盐和丁酸盐水平来显著降低高血压患者的血压。
✅ 低聚果糖可能成为免疫增强补充剂
低聚果糖 (FOS) 等益生元也观察到了类似的效果,它可以增强 SCFA 的产生、抑制病原菌并帮助维持肠道微生物稳态。通过益生元改变肠道微生物群可能是诱导保护性免疫反应的一种有前途的方法。在临床前研究中,在健康小鼠的饮食中添加果胶寡糖(POS)可以增强免疫球蛋白的产生,这与肠道细菌和醋酸盐的增加相关。这些发现表明,FOS 和 POS 可以作为川崎病患者潜在的免疫增强补充剂。
然而,益生元对川崎病的影响研究有限,有研究提出补充益生元可以改善川崎病患者的肠道免疫功能,从而提高治疗效果和疾病预后。
粪菌移植
✅ FMT可能在川崎病的治疗中发挥特定的作用
粪菌移植(FMT)有望直接重建紊乱的肠道微生态结构,将“有益菌减少、条件致病菌增加”的失衡状态恢复为相对健康的菌群组成,从而纠正川崎病急性期特征性的菌群紊乱。通过增强短链脂肪酸(SCFA)的合成,特别是丁酸盐的合成来降低肠道通透性,从而减轻疾病的严重程度,这有助于保持上皮屏障的完整性。
此外,由于肠道微生物群在调控系统免疫中具有核心作用,FMT还可能通过整体性免疫重塑,减轻血管炎症反应,从而在一定程度上降低冠状动脉损伤风险。
尽管如此,肠道微生物组在川崎病发病机制中的作用仍处于研究的初步阶段,FMT治疗急性期KD患者可能还不成熟,其治疗效果还不稳定。
饮食调节
饮食会影响肠道菌群的组成,进而影响全身疾病。
✅ 多酚和类胡萝卜素对川崎病有积极作用
β-胡萝卜素和虾青素等膳食类胡萝卜素已被证明可以促进肠道免疫系统的成熟并增加 IgA 的产生,这对肠道健康至关重要。此外,大豆异黄酮可以影响 Fcγ 受体功能,这对于 KD 的发病机制及其对 IVIG 治疗的反应具有重要意义。
饮食中的多酚和类胡萝卜素可能对川崎病具有积极作用,而高脂饮食则未显示出类似益处。
肠道微生物组作为川崎病的重要调控因素,正逐渐成为具有潜力的治疗靶点。以微生态重塑为核心的干预策略,包括益生菌、益生元、粪菌移植及饮食调节等,均可通过恢复菌群稳态、促进短链脂肪酸生成、增强肠道屏障功能及调节免疫平衡,从不同层面减轻炎症反应并可能降低冠状动脉损伤风险。
A. muciniphila、F. prausnitzii及丁酸梭菌等益生菌,以及低聚果糖、果胶寡糖等益生元均显示出一定的保护作用;粪菌移植则在重建整体菌群结构方面具有潜在优势;而富含多酚和类胡萝卜素的饮食亦可能带来益处。
然而,目前相关研究仍以临床前和探索性研究为主,证据尚不充分,未来仍需更多高质量临床研究以验证其安全性与有效性。
越来越多证据提示,川崎病并不只是血管和免疫系统“出了问题”,肠道菌群失衡、短链脂肪酸减少、肠屏障受损以及微生物代谢产物入血,可能共同参与了炎症放大和血管损伤过程。更重要的是,肠道微生态状态还可能影响IVIG治疗反应及冠状动脉病变风险,使其成为疾病进展的重要参与者。
当然,目前关于肠道微生物群与川崎病关系的研究仍处于探索阶段。无论是益生菌、益生元、饮食调节,还是粪菌移植等微生态干预策略,虽然展现出一定潜力,但距离真正进入标准化临床应用仍需更多高质量研究验证其有效性、安全性和适用人群。
不过可以确定的是,肠道微生物组正在为川崎病研究打开一条新的路径。未来,随着菌群检测、代谢组学和个体化医学的发展,我们或许能够更早识别高风险患儿,更精准预测治疗反应,并在传统治疗基础上,通过调节肠道微生态进一步改善疾病预后。
从“治炎症”到“调节微生态”,川崎病的治疗思路正在被重新拓展。肠道中的一个个微生物,也许正隐藏着改变儿童心血管健康结局的重要答案。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Mohsenzadeh A, Mohammadi A, Mohsenzadeh H, Kamali K, Moradi M, Ebrahimi N, Sheikhy M, Zabet AH, Mirheidari H, Bavari S, Elahi R. The gut microbiota and kawasaki disease: exploring the role of microbial dysbiosis and metabolites in pathogenesis and therapeutics. Eur J Pediatr. 2026 May 1;185(5):332.
Yang Q, Kang Y, Tang W, Li M, Zhao C. Interplay of gut microbiota in Kawasaki disease: role of gut microbiota and potential treatment strategies. Future Microbiol. 2025 Mar;20(4):357-369.
Jena PK, Arditi M, Noval Rivas M. Gut Microbiota Alterations in Patients With Kawasaki Disease. Arterioscler Thromb Vasc Biol. 2025 Mar;45(3):345-358.
Chen H, Liu H, Qiao L, Liu Y, Yu D, Wang Z, Wang T, Li W. The characteristics of the gut microbiota in patients with Kawasaki disease: a systematic review. Front Microbiol. 2025 Dec 18;16:1715478.
Chen J, Yue Y, Wang L, Deng Z, Yuan Y, Zhao M, Yuan Z, Tan C, Cao Y. Altered gut microbiota correlated with systemic inflammation in children with Kawasaki disease. Sci Rep. 2020 Sep 3;10(1):14525.
Shulman ST, Rowley AH. Kawasaki disease: insights into pathogenesis and approaches to treatment. Nat Rev Rheumatol. 2015 Aug;11(8):475-82.
Zeng Q, Zeng R, Ye J. Alteration of the oral and gut microbiota in patients with Kawasaki disease. PeerJ. 2023 Jul 10;11:e15662.
Han L, Liu X, Lan Y, Hua Y, Fan Z, Li Y. Metagenomic analysis demonstrates distinct changes in the gut microbiome of Kawasaki diseases children. Front Immunol. 2024 Jul 22;15:1416185.
Rife E, Gedalia A. Kawasaki Disease: an Update. Curr Rheumatol Rep. 2020 Sep 13;22(10):75.
Yang Q, Tang W, Ren J, Li M, Zhao C. Unveiling the gut-heart potential connection: microbiota’s role in kawasaki disease and coronary artery lesions. Front Cell Infect Microbiol. 2025 May 29;15:1560083.
McCrindle BW, Rowley AH, Newburger JW, Burns JC, Bolger AF, Gewitz M, Baker AL, Jackson MA, Takahashi M, Shah PB, Kobayashi T, Wu MH, Saji TT, Pahl E; American Heart Association Rheumatic Fever, Endocarditis, and Kawasaki Disease Committee of the Council on Cardiovascular Disease in the Young; Council on Cardiovascular and Stroke Nursing; Council on Cardiovascular Surgery and Anesthesia; and Council on Epidemiology and Prevention. Diagnosis, Treatment, and Long-Term Management of Kawasaki Disease: A Scientific Statement for Health Professionals From the American Heart Association. Circulation. 2017 Apr 25;135(17):e927-e999. doi: 10.1161/CIR.0000000000000484. Epub 2017 Mar 29. Erratum in: Circulation. 2019 Jul 30;140(5):e181-e184.
Dietz SM, van Stijn D, Burgner D, Levin M, Kuipers IM, Hutten BA, Kuijpers TW. Dissecting Kawasaki disease: a state-of-the-art review. Eur J Pediatr. 2017 Aug;176(8):995-1009.
Rowley AH, Shulman ST. The Epidemiology and Pathogenesis of Kawasaki Disease. Front Pediatr. 2018 Dec 11;6:374.
Yim D, Curtis N, Cheung M, Burgner D. Update on Kawasaki disease: epidemiology, aetiology and pathogenesis. J Paediatr Child Health. 2013 Sep;49(9):704-8.
谷禾健康
现在越来越多的人出现血脂不正常、腰围增加、血糖略高,这背后的隐藏风险,可能正在悄悄累积。
在全球范围内,代谢综合征已成为最受关注的健康挑战之一,患病率仍呈逐年上升趋势。它不仅显著增加心血管疾病、2型糖尿病及脂肪肝的风险,也对医疗资源和生活质量带来巨大压力。更让人警惕的是,这种代谢异常往往早期无明显症状,很多人直到发现血脂异常或血糖升高才意识到问题。
医学界和科学界也一直都在不断探索代谢综合征的发病机制和新的干预途径。传统的观点主要关注遗传因素、生活方式以及宿主自身的代谢紊乱,但近年来多个证据同时表明,代谢综合征和血脂异常通常同时存在——肠道菌群是将它们联系起来的关键因素之一。
肠道菌群影响食物的消化方式、胆汁酸的处理以及炎症信号在全身的释放。当肠道生态系统失衡时,新陈代谢可能转向胰岛素抵抗和脂质处理改变——这会导致甘油三酯升高、高密度脂蛋白(俗称好胆固醇)降低,有时还会增加 LDL 颗粒。
相关机制包括短链脂肪酸、胆汁酸、TMAO等。例如肠道细菌将初级胆汁酸转化为调控能量平衡、葡萄糖代谢及胆固醇处理的次级胆汁酸,通过FXR和TGR5受体发挥作用。某些微生物模式减少有益胆汁酸转化,降低胆固醇清除效率,进一步加剧脂质调节异常。同时,代谢综合征与低度炎症相关,菌群失衡可增加肠道通透性,使细菌成分激活免疫通路,加重胰岛素抵抗和血脂异常,形成一个循环,可能延续血脂异常。
本文将从多个层面深入探讨肠道微生物群如何影响血脂代谢,以及这些微生物学的改变如何最终导致血脂异常的发生。首先介绍代谢综合征的流行病学现状和临床特征,然后聚焦于血脂异常在代谢综合征中的核心地位,接着详细阐述肠道微生物群影响血脂代谢的五大核心机制,总结代谢综合征患者特征性的微生物组模式改变,最后讨论为什么肠道菌群检测对于代谢综合征的防控具有重要意义,以及这一领域未来的发展方向和临床转化前景。
代谢综合征是什么?
代谢综合征(英文名为Metabolic Syndrome,经常被简称为MetS),它是一组代谢紊乱症候群的集合。
根据国际糖尿病联盟(IDF)及多学会联合发布的统一诊断标准,代谢综合征的诊断需要满足以下五项中的三项或更多:
从这个诊断标准我们可以看出,血脂异常本身就是代谢综合征的核心诊断指标之一,这也说明了血脂异常在代谢综合征中的重要地位。
代谢综合征的全球发病率持续上升
全球成人代谢综合征患病率约为20%–25%(多项流行病学研究估计),这个比例意味着每四个成年人中就有一个患病,患者总数已经超过了10亿人。
更值得警惕的是,在过去数十年中呈显著上升趋势。这种快速增长的背后,是全球范围内肥胖症的流行。肥胖,特别是腹型肥胖,正是代谢综合征最重要的危险因素之一。
主要风险因素
代谢综合征的发生发展是一个复杂的过程,是遗传因素与环境因素长期相互作用的结果。我们可以将这些风险因素分为不可控和可控两大类。
不可控的风险因素:
年 龄
年龄是一个无法改变的因素,然而,它能帮助我们识别高风险人群。随着年龄增长,患代谢综合征的风险显著增加。
具体而言,随着年龄的增长,肌肉量会逐渐减少,而肌肉是消耗葡萄糖的关键组织。肌肉量的减少直接导致胰岛素敏感性下降。与此同时,随着年龄的增长,内脏脂肪的积累也会加重代谢负担。
遗 传
遗传易感性也是一个重要的不可控因素。研究已经发现了数十个与代谢综合征相关的遗传位点,这些位点每个单独的效应虽然不大,但累积起来可以显著影响患病风险。
如果父母或兄弟姐妹中有人患有代谢综合征、2型糖尿病或心血管疾病,患病几率会显著增加。
不过,遗传易感性并不意味着必然患病,健康的生活方式仍然能够有效地预防疾病的发生。
性 别
性别我们前面已经提到了,男性患病风险高于绝经前女性,这主要是性激素的保护作用在起作用。
女性在绝经前由于雌激素对脂质代谢、脂肪分布和血管功能具有一定保护作用,风险相对较低;但绝经后,随着雌激素水平下降,内脏脂肪增加、LDL-C升高、胰岛素敏感性下降,代谢综合征发生风险会明显上升。
可控的风险因素:
饮食——关键变量
饮食不是吃得多或者少的问题,是能量摄入、营养结构、脂肪类型、碳水质量、膳食纤维水平和饮食节律共同决定了代谢后果。
——饮食结构
富含饱和脂肪、反式脂肪、添加糖和精制碳水化合物的饮食模式,会促进能量过剩、内脏脂肪堆积、肝脏脂质合成增加和胰岛素抵抗。长期如此,机体更容易出现中心性肥胖、甘油三酯升高、脂肪肝、血糖异常等代谢综合征相关表现。
膳食纤维、全谷物、豆类、蔬菜水果、多酚类食物和优质不饱和脂肪酸摄入不足,也会削弱代谢保护作用。尤其是膳食纤维不足,会减少肠道菌群可利用底物,影响短链脂肪酸生成、肠屏障功能和炎症调节。
——脂肪摄入问题
需要强调的是,脂肪本身并不是一概有害。适量膳食脂肪对细胞结构、脂溶性维生素吸收、饱腹感和能量平衡都有重要作用。需要关注的是脂肪来源和脂肪酸类型。
从肠道微生态角度看,饮食也是塑造肠道菌群结构和功能的主要外部因素。长期高脂、高糖、低纤维饮食可能降低产短链脂肪酸菌,影响胆汁酸代谢和肠道屏障功能,进一步加重代谢异常。
运 动
缺乏运动是另一个重要的可控危险因素。出门坐车,上楼电梯,办公室久坐,回家躺着看电视,每天的体力活动量比五十年前减少了很多。规律的运动不仅可以帮助我们控制体重,还能提高骨骼肌胰岛素敏感性,增加葡萄糖转运蛋白GLUT4表达,促进糖原合成,提高脂肪酸氧化能力,并降低内脏脂肪含量。
对于代谢综合征的人群,很多研究已经提示,即便体重下降幅度有限,规律有氧运动和抗阻训练也能改善胰岛素抵抗、降低甘油三酯、提高HDL-C,并改善血压和炎症状态。
世界卫生组织推荐成年人每周至少进行150分钟中等强度的有氧运动,但是调查显示,仅约20%–30%的成年人达到推荐水平。
吸烟 饮酒
吸烟和过量饮酒也会显著增加代谢综合征的患病风险。
烟草中的尼古丁会引起血管收缩,升高血压,还会影响胰岛素信号传导,降低胰岛素敏感性。长期吸烟的人,患代谢综合征的风险比不吸烟者高出许多。
过量饮酒(如每日酒精摄入超过20–30 g),影响肝脏的脂代谢,还会提供大量的空热量,容易导致肥胖。研究发现,每天酒精摄入量超过25克,代谢综合征患病风险大大增加。
压力 睡眠
长期精神压力也是一个容易被忽视的危险因素。现代社会生活节奏快,竞争压力大,很多人长期处于慢性应激状态。
慢性压力会导致体内皮质醇水平持续升高,皮质醇是一种糖皮质激素,长期高水平的皮质醇会促进内脏脂肪堆积,升高血糖和血压,还会打乱正常的饮食节律,导致暴饮暴食。这些都会增加代谢综合征的发病风险。
睡眠不足和昼夜节律紊乱同样重要。睡眠时间不足、睡眠质量下降、夜间进食、轮班工作等因素,都会影响胰岛素敏感性、食欲激素、交感神经活性和炎症状态。临床上,睡眠呼吸暂停也常与中心性肥胖、胰岛素抵抗、高血压和血脂异常共同出现。
胰 岛 素 抵 抗
生物标志物层面的中间危险因素。胰岛素抵抗被认为是代谢综合征最核心的病理生理基础。
所谓胰岛素抵抗,就是指身体对胰岛素的反应变得不敏感,胰岛素不能有效地发挥降低血糖、调节脂代谢的作用。身体需要分泌更多的胰岛素才能维持血糖正常,长期高胰岛素血症会进一步加重代谢紊乱。
其 他
慢性低度炎症也是一个重要的中间危险因素,代谢综合征患者体内的促炎细胞因子水平普遍升高,这些炎症因子会干扰胰岛素信号传导,损伤血管内皮功能,促进动脉粥样硬化的发生发展。
脂肪组织功能异常同样关键,当脂肪细胞储存过多的脂肪时,脂肪细胞会发生肥大、缺氧,释放出大量的游离脂肪酸和炎症因子,进入血液循环,影响肝脏、肌肉、胰腺等多个器官的代谢功能。
伴随症状与疾病进展
代谢综合征自然病程呈现出渐进性发展的特点,从正常代谢到明显的代谢综合征,往往需要几年甚至十几年的时间。了解这个发展过程,有助于我们理解在不同阶段应该采取什么样的应对策略。
★ 早期阶段:指标轻度异常,但干预价值最高
在疾病的早期阶段(也就是常说的前驱期),这个阶段往往没有明显的临床症状,很多人体检的时候才会发现一些轻微的异常。
例如:腰围逐渐增加,甘油三酯轻度升高,HDL-C略低,血压处于正常高值,空腹血糖轻度偏高,或者提示脂肪肝。
这个阶段很容易被忽视。因为患者可能没有明显不适,也没有达到糖尿病、高血压或严重高脂血症的诊断标准。但从代谢机制看,胰岛素抵抗、脂肪组织功能异常和慢性炎症可能已经开始出现。
实际上,这个阶段正是干预效果最好的时期,如果能够及时改变生活方式,完全可以逆转病情,阻止它进一步发展。
■ 中期阶段:多项代谢异常叠加,进入明确风险状态
如果在早期阶段没有及时干预,病情就会进展到中期阶段。这个阶段已经出现了明确的代谢异常,达到了代谢综合征的诊断标准。
出现明确高血压(≥130/85 mmHg)、部分患者到糖尿病前期(空腹血糖也开始升高,往往超过5.6 mmol/L)或2型糖尿病、明显高甘油三酯血症、低HDL-C、脂肪肝也常见(约50%–70%的患者合并非酒精性脂肪肝)、睡眠呼吸暂停(尤其是在严重肥胖的患者中,超过一半的人睡觉打呼噜,憋气,频繁缺氧)等问题。
这一阶段的特点是多个系统开始同时受累,相互影响,形成循环。
例如,脂肪肝会进一步加重肝脏胰岛素抵抗,促进VLDL分泌;高甘油三酯和低HDL-C会增加动脉粥样硬化风险;睡眠呼吸暂停会通过夜间缺氧和交感神经激活,加重血压和糖脂代谢异常。
到了中期阶段,虽然已经有了多种代谢异常,但是如果能够积极干预,仍然可以很好地控制病情,延缓甚至阻止并发症的发生。很多人通过积极的生活方式干预,显著改善代谢状态,减少药物的使用。
▲ 晚期阶段:出现器质性损伤和慢病并发症
如果病情继续发展,就会进入晚期阶段,这个阶段已经出现了严重的并发症,往往伴随难以完全逆转的器质性损伤。
例如:2型糖尿病并发症、动脉粥样硬化性心血管疾病、肝病、肾病等。
大量的队列研究已经证实了代谢综合征对健康的严重危害。
一项荟萃分析纳入了超过一百万人的随访数据,结果显示,代谢综合征患者发生心血管事件的风险是正常人群的约2-3倍,发生2型糖尿病的风险更是增加了5倍。
还有研究发现,代谢综合征不仅增加心血管疾病和糖尿病的风险,与多种癌症风险增加相关(证据在不同癌种中强度不一),包括乳腺癌、结肠癌、胰腺癌等。这可能与慢性低度炎症、胰岛素抵抗、性激素水平改变等多种机制有关。
此外,代谢综合征还会增加认知功能下降和痴呆的风险,对老年人的健康构成更大的威胁,而且证据仍在不断积累。
以上自然病程我们可以看出,代谢综合征实际上是肝脏、脂肪组织、肠道、免疫系统和血管系统共同作用后的结果。代谢综合征的预防和干预越早越好。
也正因为如此,下一部分就有必要把血脂异常单独拎出来讨论:为什么在代谢综合征中,血脂异常不仅是诊断指标,更是心血管风险、肠-肝代谢轴和菌群干预价值的关键入口。
血脂异常在代谢综合征中不仅仅是五项诊断指标之一,它实际上承载着代谢状态、胰岛素敏感性、炎症水平和心血管风险的综合信息。理解血脂异常的特点和机制,有助于制定更精准的风险分层和干预策略。
血脂异常在代谢综合征中的核心地位
在代谢综合征的诊断标准中,高甘油三酯和低高密度脂蛋白胆固醇(HDL-C)就已经占据两项核心指标。血脂异常不仅是代谢综合征的重要诊断依据,还能够反映整体代谢紊乱的严重程度及其潜在风险,同时也是连接其他代谢紊乱与心血管终点事件的关键环节。
临床流行病学显示:
血脂异常不仅是代谢综合征的结果,也可能在代谢综合征的发生发展中起到推动作用。
血脂异常与心血管风险:独立且显著
研究证实:
胰岛素抵抗:血脂异常的驱动力
这要从代谢综合征的病理生理机制说起。代谢综合征的核心是胰岛素抵抗,胰岛素抵抗不仅会影响血糖代谢,还会直接影响脂肪组织的脂解过程。
当胰岛素抵抗发生时,脂肪组织对胰岛素的抗脂解作用不敏感,导致脂肪组织持续释放大量的游离脂肪酸进入血液循环。这些游离脂肪酸被肝脏摄取之后,就会刺激肝脏合成更多的甘油三酯和极低密度脂蛋白,导致血脂异常的发生。同时,胰岛素抵抗还会影响脂蛋白脂酶的活性,影响甘油三酯的清除,进一步加重高甘油三酯血症。
从这个角度我们可以看出,是胰岛素抵抗的重要代谢表现之一,它反映了全身代谢紊乱的严重程度。因此,血脂异常的检测和管理,应该成为代谢综合征防控的核心环节之一。
代谢综合征——脂质三联征
代谢综合征血脂异常具有高度特征性,被称为脂质三联征或致动脉粥样硬化血脂谱。
注:因为这种血脂谱具有很强的致动脉粥样硬化作用,心血管危害远超单纯的高胆固醇血症。
具体来说,代谢综合征的脂质三联征包括三个主要特点:
1、高甘油三酯血症
大部分代谢综合征患者会出现空腹甘油三酯(TG)升高,一般诊断标准是空腹甘油三酯≥1.7 mmol/L。
甘油三酯升高是代谢综合征血脂异常最常见的表现,这和我们前面提到的游离脂肪酸(FFA)释放增加、肝脏合成极低密度脂蛋白(VLDL)增加密切相关。
高甘油三酯血症不仅仅本身是一个危险因素,更重要的是,高甘油三酯血症往往伴随着其他脂蛋白的异常改变,共同导致动脉粥样硬化的发生发展。
2、低高密度脂蛋白胆固醇血症
代谢综合征患者大多出现高密度脂蛋白胆固醇降低。诊断标准:
男性<1.0 mmol/L,女性<1.3 mmol/L。
高密度脂蛋白胆固醇被我们称为”好胆固醇“,高密度脂蛋白胆固醇降低,这种保护作用就会减弱,动脉粥样硬化的风险就会增加。
注:高密度脂蛋白胆固醇负责将胆固醇从周围组织转运回肝脏进行代谢和排泄,这个过程叫做胆固醇逆向转运,它具有抗动脉粥样硬化的作用。
在代谢综合征患者中,高密度脂蛋白胆固醇降低往往伴随着甘油三酯升高同时出现,这两者之间存在密切的代谢联系。当甘油三酯升高时,胆固醇酯转运蛋白活性增加,会促进高密度脂蛋白中的胆固醇转移到极低密度脂蛋白和低密度脂蛋白中,导致高密度脂蛋白胆固醇水平降低。
3、小而密低密度脂蛋白比例升高
很多人都知道低密度脂蛋白胆固醇是”坏胆固醇“,但其实低密度脂蛋白并不是均匀的,它还可以根据颗粒大小分为不同的亚型:
其中小而密的低密度脂蛋白致动脉粥样硬化作用远远强于大而轻的低密度脂蛋白。
原因是:小而密LDL颗粒更易氧化、穿透血管内皮并形成泡沫细胞,即使总LDL-C正常,也显著增加心血管事件风险。
这种协同效应使代谢综合征患者的血脂异常风险复杂而显著
多项大型临床研究已经证实,在部分研究中,TG/HDL比值或非HDL胆固醇等指标对心血管风险具有更好的预测能力。
对于代谢综合征患者来说,我们不能仅仅关注总胆固醇和低密度脂蛋白胆固醇,还需要关注甘油三酯和高密度脂蛋白胆固醇,在有条件情况下可进一步评估(如ApoB或LDL颗粒特征)。
传统干预策略
目前临床上对于代谢综合征相关的血脂异常,主要的干预策略包括生活方式干预和药物治疗两大类。这两种策略都取得了一定的效果,但是也存在明显的局限性,也需要寻求新的干预方式。
生活方式干预是基础
包括控制饮食、增加运动、减轻体重、戒烟限酒等。健康的生活方式确实可以改善血脂异常,也可以改善胰岛素敏感性。
但是现实问题在于,生活方式干预的长期依从性普遍较低(多项研究显示仅有少部分患者能够长期坚持)。大多数人在坚持几个月之后都会逐渐回到原来的不良生活习惯。这其中有很多原因,比如工作忙、压力大、社交应酬多、难以抵制美食的诱惑等等。所以,仅仅依靠生活方式干预,很难长期有效地控制血脂异常。
药物治疗是目前临床上控制血脂异常的主要手段
——高胆固醇血症
首选的药物是他汀类药物。
大量的临床试验证实,他汀可以抑制胆固醇合成,显著降低低密度脂蛋白胆固醇,减少心血管事件。
但是,他汀类药物也存在局限性。对甘油三酯升高和低HDL-C的改善相对有限,尤其是对于高甘油三酯血症和低高密度脂蛋白胆固醇血症,他汀的效果有限。还有少数患者不能耐受他汀,服用他汀之后会出现肌肉疼痛、乏力,甚至肝功能异常,这些不良反应导致患者不得不停药。
——高甘油三酯血症
临床上常用的药物是贝特类药物。
贝特可以有效降低甘油三酯,升高高密度脂蛋白胆固醇。
但是贝特类药物也存在问题,它的主要副作用是会增加他汀的肌肉不良反应,与部分他汀联合使用时可能增加肌病风险。而且,贝特类药物虽然可以改善血脂谱,但是对于减少心血管事件的获益证据并不像他汀那么充分。
除了他汀和贝特,还有烟酸、依折麦布、PCSK9抑制剂等其他调脂药物,但是这些药物也各有各的局限性。
更深层次的问题在于,主要针对血脂异常这一表型进行干预,而对上游代谢紊乱(如胰岛素抵抗)的直接作用有限。
代谢综合征相关的血脂异常,根源在于胰岛素抵抗、脂肪组织功能异常、肠道菌群紊乱等深层次的问题,传统药物并没有针对这些根本原因进行干预,所以往往需要长期甚至终身服药,停药之后血脂很容易再次升高。
这种现状促使科学界不断寻找新的治疗靶点,而肠道微生物组正是目前看来最具前景的方向之一。
近二十年来的研究已经证实,肠道微生物组在脂质代谢中发挥着非常重要的作用,很多代谢综合征患者的血脂异常,都和肠道微生物组的异常改变密切相关。通过调节肠道微生物组来改善血脂异常,有望从根本上解决问题,为代谢综合征的治疗提供全新的思路。
在血脂代谢领域,大量的研究已经明确证实,肠道微生物群通过多种不同的机制影响宿主的脂质吸收、合成、转运和代谢,这些机制共同作用,最终影响血脂水平。目前学术界已经比较明确的核心机制主要有五个方面:
10.1007/S11154-019-09512-0
机制一:短链脂肪酸(SCFA)的调控作用
短链脂肪酸是肠道微生物群对宿主代谢产生影响的重要信号分子,也是目前研究最为深入、证据最充分的机制之一。
肠道细菌可以产生各种各样的糖苷水解酶,能够分解膳食纤维,将它们发酵产生短链脂肪酸。
所以说,膳食纤维对健康的好处,很大一部分是通过短链脂肪酸实现的。
短链脂肪酸主要通过三条途径调控血脂代谢。
途径一 | 脂肪组织:抑制脂解与炎症
第一条途径是通过G蛋白偶联受体介导的信号通路,抑制脂肪组织的脂肪分解。
在肠道上皮细胞、免疫细胞、脂肪细胞上都表达着两种特殊的G蛋白偶联受体,叫做GPR41和GPR43,这两种受体的配体是短链脂肪酸。
当短链脂肪酸和这些受体结合之后,会激活细胞内的信号通路,产生一系列生理效应。其中一个很重要的效应就是抑制脂肪组织中的脂肪分解。
——抑制脂肪分解,改善血脂
脂肪分解是脂肪细胞把储存的甘油三酯分解成游离脂肪酸释放到血液中,这个过程如果过度活跃,就会导致血液循环中游离脂肪酸增加,过多的游离脂肪酸被肝脏摄取之后,就会刺激肝脏合成更多的甘油三酯和极低密度脂蛋白,导致血脂升高。
而短链脂肪酸通过激活GPR41/43受体,可以抑制这个过度活跃的脂解过程,减少游离脂肪酸的释放,从而减轻肝脏的脂代谢负担,降低血脂水平。
——抗炎,改善胰岛素敏感性
肥胖和代谢综合征患者的脂肪组织中会有大量的巨噬细胞浸润,这些巨噬细胞会释放促炎细胞因子,这些促炎细胞因子会进一步加重胰岛素抵抗,促进脂肪分解。
短链脂肪酸通过激活GPR43受体,可以抑制巨噬细胞的促炎激活,减少促炎细胞因子的释放,改善脂肪组织的慢性炎症,从而改善胰岛素敏感性,间接改善脂代谢。
途径二 | 肝脏:调节胆固醇与脂肪酸合成
短链脂肪酸产生后,通过肠道吸收,经门静脉进入肝脏,其中丙酸的作用最为显著。
——丙酸直接抑制关键酶
研究发现,丙酸可以直接抑制肝脏胆固醇合成的关键限速酶——HMG-CoA还原酶(3-羟基-3-甲基戊二酰辅酶A还原酶),这一酶也是他汀类药物主要靶点。
通过抑制HMG-CoA还原酶,丙酸能够减少肝脏内源性胆固醇合成,从而降低血液中的胆固醇水平。
动物实验研究证实,给高脂饮食喂养的小鼠补充丙酸,可以显著降低血清总胆固醇和低密度脂蛋白胆固醇水平。
编辑
——丙酸调控脂肪酸合成与甘油三酯降低
研究发现,丙酸可以抑制肝脏中脂肪酸合成关键酶ACC和FAS的表达,减少从头合成脂肪酸,从而减少肝脏甘油三酯的合成,降低血清甘油三酯水平。
途径三 | 肠道激素:调节胰岛素敏感性与食欲
第三条途径通过调节肠道激素分泌,改善胰岛素敏感性,减少食欲。
肠道中的L细胞能够分泌一类重要的肠道激素:
这两种肠道激素都有很重要的代谢调节作用:
研究发现,短链脂肪酸能够刺激肠道L细胞分泌更多的GLP-1和PYY,从而发挥这些有益的代谢效应。胰岛素敏感性改善之后,脂代谢也会随之改善,游离脂肪酸释放减少,肝脏合成甘油三酯也会减少。
食欲减少有助于控制体重,减轻肥胖,进一步改善代谢。
机制二:影响胆汁酸代谢
胆汁酸是肝脏合成的重要分子,主要生理功能是帮助膳食脂肪的消化吸收。肝脏合成的胆汁酸储存在胆囊中,吃饭后胆囊收缩,将胆汁酸排入肠道帮助脂肪乳化和吸收。大约95%的胆汁酸在回肠末端被重新吸收,通过门静脉回流至肝脏,形成肠-肝循环。
过去人们认为胆汁酸仅仅是一种消化液,但近二十年来的研究表明,它同时也是重要的信号分子,能够激活核受体和G蛋白偶联受体,调控糖脂代谢,对全身代谢具有深远影响。
而肠道微生物群在胆汁酸代谢中发挥关键作用,能够通过多种酶改变胆汁酸组成和结构,进而影响其信号功能,最终调控宿主脂质代谢。
1、肠道菌群通过胆汁盐水解酶对胆汁酸解偶联
肝脏合成的胆汁酸,在分泌到胆汁中的时候,会和甘氨酸或者牛磺酸结合,形成结合型胆汁酸。结合型胆汁酸才能发挥正常的生理功能。
——胆汁酸的解偶联过程
当胆汁酸进入肠道之后,肠道中的很多细菌,主要是乳杆菌、双歧杆菌这些有益菌,能够产生一种叫做胆汁盐水解酶(简称BSH)的酶,这种酶能够把结合型胆汁酸中的甘氨酸或者牛磺酸水解下来,变成游离型胆汁酸。
——解偶联之后的游离型胆汁酸和结合型胆汁酸有什么不同?
主要的区别在于它们在肠道的重吸收效率。
游离型胆汁酸更容易被肠道被动重吸收,但是也有一部分会随着粪便排出体外。
如果BSH活性发生改变,就会影响胆汁酸的肠肝循环效率,改变胆汁酸的返回量,从而影响肝脏中胆汁酸的合成。
2、肠道菌群通过FXR信号调控肝脏脂蛋白合成
FXR(法尼醇X受体)是一种核受体,它主要在肝脏和肠道表达,它的配体就是胆汁酸。
研究发现,肠道微生物改变导致胆汁酸组成异常,会过度激活肠道FXR,FXR激活之后会通过循环中的FGF15/19(成纤维细胞生长因子15/19)信号,影响肝脏的脂代谢,促进VLDL合成,导致高甘油三酯血症。
3、通过TGR5受体激活增加能量消耗
TGR5是一种G蛋白偶联受体,它在棕色脂肪组织中高表达。
研究发现,代谢综合征患者往往次级胆汁酸合成减少,TGR5激活不足,能量消耗减少,这也会促进肥胖和血脂异常的发生。
机制三:内毒素血症与慢性低度炎症
内毒素血症和慢性低度炎症是连接肠道菌群紊乱与代谢综合征的一个核心机制,这个机制也是最早被发现和研究比较透彻的机制。
革兰氏阴性细菌的细胞壁外面有一种成分叫做脂多糖,简称LPS,也称为内毒素。
<向上滑动阅览>
还有研究发现,通过饮食干预改善肠道菌群,降低内毒素血症,可以显著改善血脂异常,进一步证实了内毒素血症在血脂异常中的介导作用。
机制四:胆碱代谢与TMAO途径
每天我们从膳食中摄入胆碱,尤其在鸡蛋、动物肝脏、红肉等食物中含量较高。摄入的胆碱大部分被吸收利用,但一部分进入大肠,由肠道细菌代谢。特定菌群产生的胆碱三甲胺裂解酶能将胆碱转化为三甲胺(TMA),随后通过门静脉进入肝脏。肝脏中的FMO3(黄素单加氧酶3)将TMA氧化为TMAO。
TMAO影响胆固醇和血脂代谢主要通过以下途径。
1、抑制胆固醇逆向转运
首先是抑制胆固醇逆向转运,减少胆固醇外流。前面提到过,胆固醇逆向转运是把胆固醇从周围组织包括动脉粥样斑块转运回肝脏代谢排泄的过程,这个过程是对抗动脉粥样硬化的重要保护机制。这个过程中,ABCA1和ABCG1这两个转运蛋白发挥着关键作用,它们位于巨噬细胞表面,能够把细胞内多余的胆固醇转运出来,交给高密度脂蛋白。
研究提示TMAO可能通过下调巨噬细胞ABCA1和ABCG1的表达,抑制胆固醇外流,从而影响胆固醇逆向转运,促进动脉粥样硬化的发生。
2、促进泡沫细胞形成
第二条途径主流假说是通过促进泡沫细胞形成。泡沫细胞是动脉粥样硬化斑块中最早出现的细胞成分,它是巨噬细胞吞噬了大量的氧化低密度脂蛋白之后形成的。
部分研究显示TMAO能够上调巨噬细胞表面清道夫受体SR-A1的表达,SR-A1能够识别并吞噬氧化低密度脂蛋白,SR-A1表达增加之后,巨噬细胞吞噬更多的氧化低密度脂蛋白,更容易形成泡沫细胞。泡沫细胞大量形成,可能是动脉粥样硬化发生发展的关键步骤。
3、抑制胆汁酸合成
胆固醇7α-羟化酶,也就是CYP7A1,是肝脏合成胆汁酸的关键限速酶。
研究显示TMAO能够抑制肝脏CYP7A1的表达,导致胆汁酸合成减少。胆固醇是合成胆汁酸的原料,胆汁酸合成减少,意味着胆固醇消耗减少,更多的胆固醇留在体内,同时,胆汁酸排泄减少也会影响胆固醇的平衡,导致血液中胆固醇水平升高。
<向上滑动阅览>
从干预的角度来看,如果我们能够抑制肠道细菌产生TMAO,就能够降低血浆TMAO水平,从而降低心血管风险。
目前已经有一些研究在探索这个方向,比如使用特异性的小分子抑制剂抑制胆碱三甲胺裂解酶的活性,或者使用噬菌体特异性地清除产TMAO的细菌,这些研究都取得了一些初步的成果,未来有可能开发出新的降脂和抗动脉粥样硬化药物。
机制五:膳食脂肪吸收调控
除了我们前面介绍的这四个机制,肠道菌群还能够直接影响肠道上皮细胞对膳食脂肪的吸收效率,以及乳糜微粒的形成和分泌过程,这个直接的调控作用对血脂水平也有着重要的影响。
脂肪吸收
吃进去的脂肪,需要经过一系列的步骤才能被身体吸收利用。
肠道菌群和脂质通过菌群代谢物、胆汁酸和免疫细胞吸收
编辑
脂蛋白脂酶不仅存在于脂肪组织和肌肉组织的血管内皮表面,在肠道上皮细胞的表面也有表达,它能够帮助分解乳糜微粒中的甘油三酯,促进脂肪酸的吸收。
研究发现,肠道菌群代谢产生的一些短链脂肪酸和其他代谢产物,能够影响肠道上皮细胞脂蛋白脂酶的活性,如果有害菌过度生长,产生的一些有害代谢产物会增加脂蛋白脂酶的活性,导致更多的膳食脂肪被吸收,过多的脂肪吸收之后,会导致血液中甘油三酯升高,也会增加脂肪堆积。
肠道菌群还能够调节肠道通透性,影响乳糜微粒进入循环。肠道菌群紊乱会损伤肠道屏障,增加肠道通透性,不仅LPS和细菌内毒素更容易进入血液循环,乳糜微粒进入循环也会增加,更多的膳食脂肪被吸收进入血液,导致血脂升高。同时,肠道通透性增加还会引起慢性低度炎症,加重胰岛素抵抗和血脂异常,形成恶性循环。
近年来,大规模肠道微生物组组学研究揭示了代谢综合征患者特有的菌群模式,尤其在伴血脂异常的人群中表现明显。这些特征不仅是疾病结果,还可能参与代谢综合征的发生和发展。
α多样性显著降低
α多样性是衡量肠道微生物群落结构的一个常用指标,它反映了肠道中物种的丰富度(也就是有多少种不同的细菌)和均匀度(也就是不同细菌的丰度分布是否均匀)。
大量的研究一致发现,代谢综合征患者的肠道菌群α多样性显著降低。
在代谢综合征伴血脂异常中,肠道微生物群的变化通常包括整体多样性下降以及有益菌的缺失。
产短链脂肪酸菌减少
多样性下降通常伴随产短链脂肪酸菌减少,如丁酸生成菌减少,使肠道调节胰岛素敏感性、脂质代谢以及炎症信号的能力下降,调节影响甘油三酯和 HDL 的炎症信号的能力减弱。
同时,多样性丧失常伴胆汁酸代谢紊乱和肠道屏障功能受损,导致低度全身性炎症增加,从而强化血脂异常和胰岛素抵抗的循环。
关键有益菌属/菌种的特征性变化
属和种的水平,代谢综合征患者也呈现出特征性的变化,一些有益菌降低,一些有害菌升高,这些变化共同推动了血脂异常的发生发展。
⭐ 有益菌显著减少
✦Faecalibacterium prausnitzii(普拉梭菌)
【产丁酸,抗炎,改善肠屏障,丰度下降 → 丁酸减少 → 炎症增加 → 胰岛素抵抗和血脂异常加重】
普拉梭菌是人体肠道中丰度最高的产丁酸菌之一,它能够发酵膳食纤维产生大量的丁酸,丁酸不仅是肠道上皮细胞的主要能量来源,还具有抗炎作用,能够改善肠道屏障功能,减少炎症反应。
大量研究一致发现,代谢综合征患者中普拉梭菌的丰度降低。普拉梭菌减少,丁酸产生减少,肠道屏障功能受损,炎症增加,这些都会加重胰岛素抵抗和血脂异常。
✦Roseburia (罗氏菌属)
【产SCFA,丰度下降 → SCFA生成减少 → 代谢保护作用减弱】
罗斯氏菌属也是非常重要的产短链脂肪酸的细菌,它也能够发酵膳食纤维产生大量的丁酸和乙酸。罗斯氏菌减少,同样会导致短链脂肪酸产生减少,对代谢的保护作用减弱。
✦ Akkermansia muciniphila(嗜黏蛋白阿克曼菌,常简称它为Akk菌)
【增强肠屏障、改善胰岛素敏感性,降低甘油三酯】
Akk菌是一种专门降解肠道黏液层中黏蛋白的细菌,它对维护肠道屏障功能非常重要。
研究发现,Akk菌能够增强肠道屏障完整性,减少内毒素血症,还能够改善胰岛素敏感性,降低体重和血脂。
动物实验研究发现,给肥胖小鼠补充Akk菌,能够降低血清甘油三酯,改善胰岛素抵抗,减轻体重,效果非常显著。
✦ Christensenellaceae(克里斯滕森菌科)
【丰度与瘦体型及代谢健康正相关,代谢综合征患者显著减少】
这个科的细菌在健康人肠道中普遍存在。
多项研究发现,克里斯滕森菌科的丰度和代谢健康指数呈强正相关,和BMI、甘油三酯呈负相关。
代谢综合征患者中克里斯滕森菌科的丰度显著降低。有意思的是,研究还发现克里斯滕森菌科的丰度和瘦体型相关,携带克里斯滕森菌科多的人,不容易发胖,代谢也更健康。
其它还有:
⭐ 有害菌显著增加
✦Escherichia/Shigella(大肠杆菌/志贺氏菌属)
【LPS产生增加 → 内毒素血症 → 慢性炎症】
这些细菌属于变形菌门,是革兰氏阴性条件致病菌,它们的细胞壁含有大量的LPS。
代谢综合征患者中这些细菌的丰度显著升高,它们产生大量的LPS,更容易导致内毒素血症和慢性炎症。
✦ Desulfovibrio(脱硫弧菌属)
【高浓度硫化氢损伤肠屏障 → 炎症 → 代谢紊乱】
脱硫弧菌是一种硫酸盐还原菌,它能够还原硫酸盐产生硫化氢。硫化氢在低浓度的时候有一定的生理作用,但是高浓度的硫化氢对肠道上皮细胞有毒性作用,能够损伤肠道屏障,增加肠道通透性,还能够抑制线粒体呼吸,影响肠道上皮细胞的能量代谢,还会加重炎症,促进代谢紊乱。
研究发现,代谢综合征患者中脱硫弧菌的丰度显著升高,而且脱硫弧菌丰度和血压、甘油三酯呈正相关。
✦Clostridium clusters(一些梭菌属的细菌)
【影响胆汁酸代谢 → 血脂异常】
特定的一些梭菌集群和胆汁酸代谢紊乱相关,它们能够改变胆汁酸的代谢,影响胆汁酸的组成和信号功能,进而影响血脂代谢。这些梭菌过度生长,会导致胆汁酸代谢重编程,促进血脂异常的发生。
其它还有:
功能基因谱的特征变化
代谢综合征患者的微生物群功能能力下降,表现为:
这些功能性变化揭示了代谢综合征肠道微生态对血脂异常、胰岛素抵抗及慢性低度炎症的上游贡献。理解这些特征性变化,可以为精准干预提供明确靶点。
通用干预的局限性
常规药物在代谢综合征合并血脂异常的患者中疗效有时不理想,因为无法考虑影响甘油三酯、HDL 和全身炎症的特定肠道-胆汁酸-代谢物信号回路。
热量控制难以修复肠道生态
许多标准的健康饮食方法强调热量控制或食物限制(广泛限制),但它们可能无法可靠地恢复驱动胆汁酸受体信号(FXR/TGR5)和肝脂调控的肠道生态系统功能。
如果一个人的肠道菌群纤维发酵能力低且多样性减少,仅仅添加一些纤维或做出模糊的饮食改进,通常无法有效改善肠道胆汁酸转化模式,也难以调节VLDL生成或提升胰岛素敏感性。
低度慢性炎症难以消除
即便进行了饮食调整或生活方式干预,低度慢性炎症在代谢综合征患者体内仍可能持续存在。
这主要与短链脂肪酸产量下降和肠道屏障受损有关,导致内毒素(如LPS)进入循环,维持炎症。持续的炎症环境不仅影响脂质代谢,还强化胰岛素抵抗,使甘油三酯升高、HDL下降的血脂异常难以改善。
通用干预很少针对屏障完整性和 SCFA 生成的根本驱动因素(如持续可发酵的纤维数量/品种、富含多酚的植物摄入量,以及对发酵或益生元食品的个体耐受性)。如果不解决这些功能缺陷,脂质水平的改善可能会趋于平稳,因为炎症和胰岛素抵抗环境持续促进动脉粥样状、富含 ApoB 的脂蛋白谱。
个体差异决定效果
最重要的是一刀切的建议往往忽视了微生物生态和饮食反应中的个体间差异。
两个人可能都吃得更好,但他们的基线菌群组成、胆汁酸库、运输时间和代谢反应可能导致截然不同的结果。帮助一个人的微生物组产生 SCFA 或改善胆汁酸信号的机制,对另一个人可能影响不大,甚至因不耐受而加重症状。
如果没有基于功能标志物(如纤维摄入质量、炎症状态、血糖反应以及特定益生元/发酵策略耐受性)进行个性化调整,通用方案就不太可能在甘油三酯/HDL 和心血管代谢风险方面产生持久改善。
风险分层与早期预警
代谢综合征的发生发展是一个漫长的过程,从正常代谢到明确的代谢综合征,往往需要几年甚至十几年的时间。
肠道菌群变化:早于临床症状的预警信号
传统的危险因素,比如BMI、腰围、血压、血糖、血脂,这些都是在代谢异常已经发生之后才能发现异常。
而肠道菌群紊乱往往早于临床症状和生化异常的出现,也就是说,还没有出现血糖升高、血压升高、明确的血脂异常的时候,肠道菌群已经发生了改变。
风险分层与预测模型
基于这个特点,肠道菌群特征可以用于代谢综合征的风险分层和早期预警。
多项研究以及谷禾健康已经构建了基于肠道菌群特征的代谢综合征预测模型,这些模型的预测性能如何呢?
研究发现,基于肠道菌群特征构建的预测模型,对代谢综合征的曲线下面积(AUC)可以达到0.83-0.89,这个预测精度优于传统的危险因素,比如BMI、年龄这些指标。如果把肠道菌群特征和传统危险因素结合起来,预测精度还能进一步提高。
这个发现有什么临床意义呢?
它意味着我们可以通过检测肠道菌群,在疾病的早期阶段,甚至在还没有出现生化异常的时候,就识别出代谢综合征的高风险人群。
提前干预与疾病分期监测
研究发现,在糖耐量正常人群中,肠道微生物变化可比血糖异常提前3–5年被检测到。
也就是说,如果现在血糖、血脂都还正常,但是肠道菌群已经出现了特征性的改变,那么未来几年发生代谢综合征的风险就会显著升高,这个时候就可以提前进行干预,通过改变饮食、增加运动、补充益生菌益生元等方法,调整肠道菌群,阻止或者延缓代谢综合征的发生。这就是真正的上医医未病,预防重于治疗。
除了预测发病风险,肠道菌群变化还能够反映代谢综合征的疾病分期和严重程度。
研究发现,随着代谢综合征从早期到中期再到晚期,肠道菌群的紊乱程度也逐渐加重,α多样性逐渐降低,特征性改变也越来越明显。
因此我们可以通过检测肠道菌群,对疾病进展情况进行监测,了解疾病处于什么阶段,帮助我们制定更合适的干预策略。
个性化干预方案制定
现在医学界越来越强调精准医学,也就是根据每个人不同的特征,制定个性化的干预方案,而不是千人一方。肠道菌群检测就是实现个性化干预非常重要的一个工具,因为不同的人肠道菌群特征不一样,适合的干预方法也不一样。
例如,产短链脂肪酸菌缺乏。
如果肠道中产丁酸、产乙酸的有益菌明显减少,那么适合补充益生元,比如菊粉、低聚果糖这些益生元,它们能够选择性地促进这些有益菌的生长,增加短链脂肪酸产生,改善血脂代谢。
例如,Akkermansia muciniphila缺乏。
如果Akk菌丰度明显降低,那么可以补充特定的益生菌,或者吃一些能够促进Akk菌生长的食物,比如石榴、蔓越莓这些富含多酚的食物,能够促进Akk菌生长,改善肠道屏障功能,降低内毒素血症,改善血脂。
治疗反应预测与监测
评估药物干预效果
肠道菌群特征不仅仅能够帮助我们制定干预方案,还能够预测药物和生活方式干预的效果,通过肠道菌群特征预测对某种治疗方法的反应好不好,这对于临床治疗决策有辅助作用。
例如他汀类药物,他汀是临床上最常用的降脂药物,但是我们前面提到过,部分患者对他汀反应不佳,所以谷禾也一直在和临床推进合作看有没有办法在用药之前就预测哪些人反应好,哪些人反应不好呢?
研究发现,肠道菌群特征确实能够预测他汀的降脂疗效,特定的菌群特征。
评估减肥效果
减重,无论是通过生活方式减重还是减重手术,不同的人效果差异很大。
研究发现,基线肠道菌群中普雷沃氏菌/拟杆菌比例高的患者,减重干预的效果更好,体重减轻更多,血脂改善也更明显。另一方面,基线Akk菌丰度可以作为减重效果的预测因子,如果AKK菌丰度比较低,那么可能需要更强化的干预,或者先补充Akk菌,提高减重效果。
动态监测肠道菌群评估
在干预过程中,还可以通过动态监测肠道菌群来评估干预效果。干预之后,如果肠道菌群多样性恢复了,有益菌丰度增加了,有害菌丰度减少了,这些都可以作为代谢改善的早期生物标志物。
这些变化往往出现在血脂、血糖这些生化指标改善之前,所以我们可以通过监测菌群变化,早期了解干预是否有效,如果干预没有改善菌群,帮忙用户及时调整干预方案,避免无效治疗。
并发症风险评估
特定的肠道微生物标志物和代谢综合征并发症的风险相关,通过检测这些标志物,可以辅助评估并发症的发生风险,帮助我们进行风险分层和预防。
举例:和并发症风险有可能相关的指标:
次级胆汁酸升高
次级胆汁酸是肠道细菌代谢初级胆汁酸产生的,粪便次级胆汁酸升高和非酒精性脂肪肝的发生风险密切相关,如果有代谢综合征,同时粪便次级胆汁酸升高,那么可能需要提前进行筛查和干预。
<来源:谷禾健康肠道菌群检测数据库>
产短链脂肪酸菌减少
短链脂肪酸对代谢有保护作用,产短链脂肪酸菌减少,代谢性疾病进展的风险升高。所以检测发现产短链脂肪酸菌明显减少,那么需要更积极的生活方式干预,必要的时候补充益生元或者益生菌,增加短链脂肪酸产生,降低糖尿病等代谢疾病风险。
通过检测这些微生物标志物,我们可以更精准地评估不同并发症的风险,然后进行针对性的预防和干预。
一般支持策略
代谢综合征伴血脂异常越来越多地与肠道微生物组调节胆汁酸、炎症色调和代谢信号传递有关。一个核心支持策略是通过增加来自多样、最少加工的植物性食物(如豆类、全谷物、水果、蔬菜)的膳食纤维来改善微生物生态。
膳食纤维
膳食纤维为有益发酵菌提供能量,促进短链脂肪酸生成,如丁酸。丁酸可强化肠道屏障,减少循环内毒素(LPS),降低低度慢性炎症,从而改善胰岛素敏感性,减轻甘油三酯升高和HDL下降。可选益生元来源包括大蒜、洋葱、韭葱、芦笋、菊苣根/菊粉、青香蕉等,同时限制高度加工食品。
支持胆汁酸信号(天然食物)
由于肠道微生物也会调节胆汁酸,支持正常胆汁酸信号传递也是关键方法。某些细菌群落产生的二级胆汁酸可以与 FXR 和 TGR5 等受体相互作用,这些受体会影响肝脂的合成、葡萄糖处理和能量平衡。富含植物多酚和其他微生物群可及化合物的饮食可以促进更有利的细菌转变,并支持胆汁酸池,更好地支持代谢调节。
对于某些人来说,添加天然食物可能进一步增强微生物多样性和代谢反应性。每天通过多种植物(浆果、柑橘、石榴、绿叶蔬菜、十字花科蔬菜、特级初榨橄榄油、可可)增加多酚,以改善胆汁酸信号和微生物多样性。
长期饮食模式(减少加工食品)
持续减少超加工食品和过量添加糖的摄入,有助于防止菌群失调引发的动脉粥样性血脂模式(甘油三酯升高、HDL降低、非HDL/LDL升高)。
限制添加糖和精制淀粉(含糖饮料、甜食、白面包/糕点)的摄入,以减少甘油三酯负担,并限制微生物组驱动的炎症信号。
全食物饮食、逐步增加纤维摄入、改善胰岛素敏感性的生活方式,可长期强化肠-肝代谢轴,改善炎症标志物,帮助血脂向更健康的心血管风险水平转变。
如果能耐受,可以考虑发酵食品(如酸奶/克菲尔加活菌、酸菜、泡菜、天贝),以增强有益微生物并减少低度炎症。
健康脂肪与运动
选择健康脂肪而非饱和脂肪/反式脂肪(橄榄油、坚果、种子、牛油果;若耐受时可食用脂肪鱼类),以改善动脉粥样形成的血脂水平。
优先进行规律的体育活动(有氧+抗阻训练),减少久坐时间,以改善胰岛素敏感性和降低甘油三酯。
睡眠、压力管理
确保充足睡眠并管理压力(例如7-9小时睡眠、正念/呼吸/锻炼),以减少炎症,避免加重胰岛素抵抗和脂质指标。
个体化监测原则
由于胆汁酸代谢和肠道代谢物因人而异,应通过饮食和生活方式调整改善肠道功能,而尽量不要直接用补充剂替代饮食。益生菌或合生菌选择需依据有代谢或抗炎证据的菌株,并考虑剂量及个体反应。
对血脂异常患者,应避免在未监测的情况下过度干预,必要时结合血脂、血糖及炎症指标评估(如可用的CRP、血浆甘油三酯监测),尤其当存在他汀类药物或胆汁酸干预时。
复测/监测
复测的重要性和时间安排
对于伴有血脂异常的代谢综合征患者,在进行干预后进行复测是评估效果的重要环节。常见干预包括增加膳食纤维、提升植物多样性、摄入富含多酚的食物,有时还包括适量发酵食品。
一般建议干预8–12周后复测代谢和血脂标志物,以捕捉甘油三酯、HDL及非HDL/LDL的趋势性变化。这段时间足以让肠道代谢产物(如SCFA)和胆汁酸信号发生适应性改变,从而更明显地反映临床效果。
如果患者同时在进行降脂或胰岛素敏感性优化治疗,复测时间可由临床医生根据具体情况调整,但通常仍建议在同一个8–12周周期内进行安全性和有效性评估。
复测如何指导干预?
复测不仅评估血脂变化,还可用于验证干预模式是否改善肠道介导的炎症和胆汁酸代谢。需要注意的是,复测可以结合其他临床实验室指标解读结果。
最终目标是通过动态监测,确认肠道驱动的代谢物变化与甘油三酯、HDL及整体心血管代谢风险持续改善之间的相关性,而非依赖单次检测数据。这样可以为后续干预优化和个性化调整提供科学依据。
新兴治疗策略
近年来,针对代谢综合征和血脂异常的微生物干预研究呈现多条前沿方向,涵盖从益生菌到后生元的多种策略。
下一代益生菌
传统的益生菌主要是乳杆菌、双歧杆菌这些,而下一代益生菌是从健康人肠道中分离出来的,对代谢有明确益处的特定菌种,目前研究最多的就是Akkermansia muciniphila、Eubacterium hallii。
Akk菌我们前面多次介绍过,它能够改善肠道屏障,降低内毒素血症,改善胰岛素抵抗和血脂。
目前Akk菌已经进入了II期临床试验,初步结果显示,补充Akk菌能够显著降低代谢综合征患者的体重指数和甘油三酯,改善胰岛素抵抗,而且安全性很好,没有明显的不良反应。
Eubacterium hallii 是一种产丁酸菌,它也能够改善糖脂代谢,目前也在进行临床试验。相信在未来几年,这些下一代益生菌就会上市,给代谢综合征患者带来新的治疗选择。
粪菌移植(FMT)
粪便菌群移植就是把健康供体的肠道菌群移植到患者肠道内,重建患者正常的肠道菌群。
目前已经完成了一些小规模的研究,结果显示,健康供体FMT能够改善代谢综合征患者的胰岛素敏感性和血脂谱,部分患者改善效果能够维持三个月以上。
当然,目前FMT还存在一些问题,比如长期效果还不明确,供体菌群的质量控制,安全性等问题都还需要进一步研究。
未来通过把多种明确的有益菌按比例混合,代替完整的粪便,以解决供体质量控制和安全性问题,提升临床可行性,这个方向也是很有前景的。
噬菌体靶向调控
噬菌体干预通过特异性攻击目标有害细菌(如产TMAO菌),精准清除有害菌而不影响其他有益菌。相比广谱抗生素,这种方法副作用更小,精确性高。
动物实验显示,噬菌体可有效降低产TMAO菌群水平,减少血浆TMAO并降低动脉粥样硬化风险。
这个方向未来很可能开发出全新的治疗方法,精准地调节肠道菌群,改善血脂异常。
后生元干预
后生元不是活菌,而是细菌产生的有益代谢产物,或者细菌本身的一些成分,比如短链脂肪酸、特定的胆汁酸、细菌细胞壁成分等等。
后生元和活菌相比,有很多优势:
多个后生元产品已进入临床试验,未来几年有望面市。
除了这四个主要方向,还有很多其他的策略在研究之中,比如精准化营养饮食干预、益生菌+益生元的合生元、膳食益生元促进特定有益菌生长等等,这些策略都在进行研究,未来会有更多的干预方法可供选择。
整合医学模式
未来代谢综合征的管理,预测会走向多组学整合的精准医学模式,也就是整合多个层面的信息,为每个患者制定最精准的预防和治疗方案。
具体来说,整合主要包括四个层面:
基因组学:评估遗传易感性
每个人的遗传背景不同,对代谢综合征的易感性和药物反应也存在差异。通过基因组学检测,可以了解个体携带的易感位点、患病风险以及对特定药物的反应,为精准干预提供基础。
微生物组学:分析肠道菌群特征
肠道菌群是代谢综合征干预的重要对象。通过分析肠道菌群组成与功能基因,可识别有益菌减少、有害菌增加或功能异常的情况。结合这些信息,可以制定个性化干预方案,包括膳食、益生菌/益生元以及生活方式调整。
代谢组学:反映代谢状态
代谢组学通过检测血液、粪便等样本的代谢谱,如血脂、血糖、TMAO、胆汁酸和短链脂肪酸水平,直观反映个体代谢状态,同时也可评估肠道菌群功能。与宏基因组学结合,可以更全面地了解代谢综合征的发病机制和个体差异。
生活方式组学:定制可执行方案
每个人的饮食、运动、睡眠和压力水平不同。生活方式组学通过收集这些数据,将干预措施与个人习惯匹配,从而制定切实可行、易于长期坚持的方案,提升干预效果。
多组学整合的价值
通过整合基因组学、微生物组学、代谢组学和生活方式组学的数据,可以对代谢综合征风险进行精准评估,制定最适合个体的干预策略,实现精准预防和个性化治疗。这将是未来代谢综合征管理的发展方向。
代谢综合征伴血脂异常的发生与发展,不仅涉及传统的血脂、血糖和体重因素,更深层次地与肠道微生物群调控的胆汁酸代谢、炎症状态及代谢信号传递密切相关。本文梳理了肠道微生物群通过多个不同的机制影响宿主的脂质代谢:
这五个机制共同作用,最终影响血脂水平,促进血脂异常的发生发展。
从临床应用的角度来看,肠道菌群检测能够帮助我们进行风险分层和早期预警,制定个性化的干预方案,预测治疗反应,评估并发症风险。这些应用正在逐渐从研究走向临床,未来肠道菌群检测很可能会成为代谢综合征患者常规评估的一部分。
尽管当前仍存在科学问题和技术挑战,如微生物-宿主交互作用、长期干预安全性及微生物组-药物相互作用,但随着多组学整合和大规模临床研究的推进,这一领域有望实现从基础研究到临床实践的快速转化。
未来需要更大规模的前瞻性队列研究,来进一步明确肠道菌群改变和代谢综合征发生发展的因果关系,还需要设计严谨的大规模临床试验,来验证各种肠道菌群干预方法的长期有效性和安全性。
但是无论如何,这个领域的发展方向是非常明确的,随着研究的不断深入,我们对肠道微生物组在代谢综合征中作用的理解会越来越深入,干预方法也会越来越成熟。
未来已来,对于代谢综合征高风险人群,以及已经患有代谢综合征的患者而言,肠道微生物组有望成为代谢综合征管理的重要抓手,了解自己的肠道菌群特征,不仅仅是了解当下的健康状态,更是把握未来健康主动权的重要一步。
希望更多的人能够了解肠道微生物组与代谢健康的关系,重视肠道健康,通过健康的饮食和生活方式,维护良好的肠道菌群平衡,远离代谢综合征,远离心血管疾病和糖尿病,享受健康美好的生活。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献:
Mohammadi F, Rudkowska I. Dietary Lipids, Gut Microbiota, and Their Metabolites: Insights from Recent Studies. Nutrients. 2025 Feb 11;17(4):639.
Ko CW, Qu J, Black DD, Tso P. Regulation of intestinal lipid metabolism: current concepts and relevance to disease. Nat Rev Gastroenterol Hepatol. 2020 Mar;17(3):169-183.
Gildner TE. Links between metabolic syndrome and the microbiome. Evol Med Public Health. 2020 Feb 19;2020(1):45-46.
Singh A, Verma A, Ashraf S, Sarfraz Sheikh D, Irfan H, Riaz R, Venjhraj F, Meghwar S, Kumar R, Tariq MD, Hamza HM, Ahsan A, Satapathy P. Role of gut microbiota in the pathogenesis of metabolic syndrome: an updated comprehensive review from mechanisms to clinical implications. Ann Med Surg (Lond). 2025 Jul 29;87(9):5851-5861.
Gut Microbiome and Metabolic Syndrome: How Dyslipidemia Is Influenced. innerbuddies
Zeng L, Yu B, Zeng P, Duoji Z, Zuo H, Lian J, Yang T, Dai Y, Feng Y, Yu P, Yang J, Yang S, Dou Q. Mediation effect and metabolic pathways of gut microbiota in the associations between lifestyles and dyslipidemia. NPJ Biofilms Microbiomes. 2025 May 28;11(1):90. doi: 10.1038/s41522-025-00721-x.
Yin J, Zhang M, Jiang W, Huang X, Yin Y. Microbial Interactions with Intestinal Lipid Digestion and Absorption: Emerging Targets for Metabolic Disorders. Research (Wash D C). 2025 Sep 19;8:0904.
Schoeler M, Caesar R. Dietary lipids, gut microbiota and lipid metabolism. Rev Endocr Metab Disord. 2019 Dec;20(4):461-472.
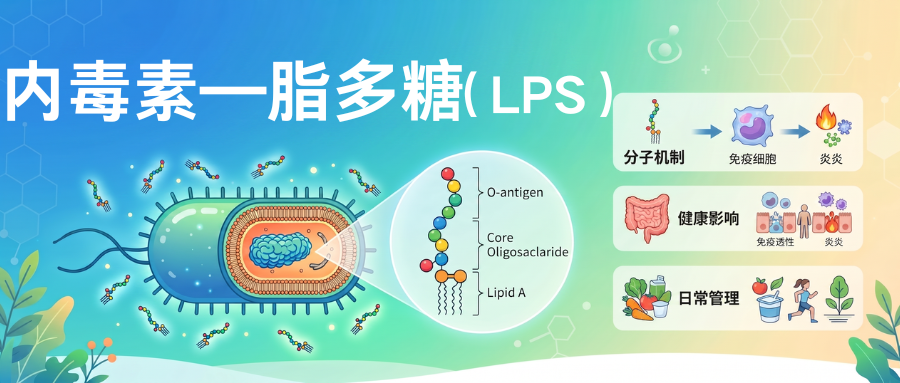
谷禾健康
你是否有过这样的经历:明明没有剧烈运动,却总是感到莫名的疲惫;或者明明控制了饮食,体重却依然居高不下,体检报告上的血糖、血脂指标也总是亮起红灯?我们习惯将这些问题归咎于“吃多了”或“动少了”,却往往忽视了一个潜伏在身体内部、肉眼不可见的“隐形杀手”——脂多糖(LPS)。
脂多糖并非外来入侵的毒素,而是我们肠道中数以万亿计细菌的细胞壁成分。在正常情况下,它安分守己地待在肠道内,甚至对免疫系统有益。然而,当肠道屏障受损或饮食结构失衡时,这些本不该进入血液的分子便会“越狱”,引发一场悄无声息却破坏力巨大的全身性慢性炎症。
这种持续存在的低水平炎症,被认为是代谢综合征、2型糖尿病、非酒精性脂肪性肝病以及动脉粥样硬化等多种慢性疾病的重要共同发病基础。脂多糖(LPS)在这一过程中发挥关键作用,可诱导并放大炎症反应,从而促进相关疾病的发生与发展。
那么,脂多糖是如何由肠道内的正常成分转变为影响机体健康的重要因素的?机体又可以通过哪些机制对其进行调控,以维持生理稳态?本文将从机制层面系统分析LPS的作用路径及其对健康的影响。
♥
▸ 脂多糖的定义与特性
脂多糖(Lipopolysaccharide,简称LPS)是革兰氏阴性菌细胞壁外膜特有的结构大分子复合物,由三个功能区域共价连接组成的异源多糖-脂质复合物,三个区域分别承担不同生理功能。
革兰氏阴性菌膜由两层细菌膜组成,分别是外层和内层膜,外膜富含脂多糖(LPS)。
脂多糖(LPS)是两性分子,类脂A部分疏水,多糖部分亲水,所以LPS能够在细菌表面形成稳定的双亲结构,维持外膜完整性,同时作为屏障抵抗抗菌物质进入细菌体内。
↘ 脂多糖与内毒素的关系
脂多糖之所以被称为”内毒素”,是因为它是革兰氏阴性菌细胞外膜的重要结构成分,通常不以游离形式主动分泌。在细菌死亡或裂解时会大量释放出来,这一特点与由活菌主动分泌的“外毒素”形成鲜明对比,因此得名“内毒素”。
↘ 内毒素与外毒素的主要区别
编辑
需要注意的是,在感染过程中,细菌不断生长和死亡,会持续释放脂多糖;而在严重感染或抗生素治疗后,大量细菌同步裂解,可能在短时间内释放大量LPS,从而加重炎症反应,严重时可引发内毒素相关的全身炎症反应综合征。
▸ 脂多糖的分子结构
LPS分子从内到外分为三个部分:最内层是类脂A,中间是核心多糖,最外层是O抗原(O特异性多糖),三个部分共价连接形成完整LPS分子。
编辑
doi.org/10.3389/fimmu.2025.1588129
★ 每个部分结构和功能都不同:
•类脂A:嵌入外膜磷脂双层,是LPS的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构;
•核心多糖:连接类脂A和O抗原,结构相对保守,是革兰氏阴性菌共同抗原成分;
•O抗原:最外层,是多糖重复单位,结构变异性最大,决定细菌血清型特异性,是细菌逃避免疫识别的重要方式。
编辑
doi.org/10.5217/IR.2014.12.2.90
这种三层结构设计是革兰氏阴性菌长期进化结果,它既保护细菌本身,也决定了它和人体免疫系统相互作用方式,类脂A是毒性中心,O抗原是免疫逃逸,这种结构对应功能的关系便于更好理解它对健康影响。
★ 脂多糖的结构多样性决定其生物活性差异
不同革兰氏阴性菌的脂多糖(LPS)在结构上存在显著差异,尤其是类脂A部分在酰基链数量、长度以及磷酸化修饰上的变化,会直接影响其免疫激活能力。因此,并非所有革兰氏阴性菌的LPS都具有相同毒性,共生菌来源的LPS通常显著低于典型致病菌。
很多人将“革兰氏阴性菌”与“强内毒素”直接等同,但实际上,不同细菌来源的LPS在毒性上差异很大。理解这种差异,有助于我们更准确地区分共生菌与致病菌的生物学影响。
↘ 类脂A:脂多糖的毒性中心和生物活性中心
类脂A嵌入外膜磷脂双层,是脂多糖的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构。LPS的大部分生物学活性,包括毒性和免疫刺激性,都由类脂A部分决定,类脂A结构变异直接改变LPS毒性强弱,六酰化饱和类脂A毒性最强,酰基链减少毒性显著下降。
编辑
doi.org/10.5217/IR.2014.12.2.90
不同来源的类脂A结构与毒性差异:
•致病菌(如大肠杆菌、沙门氏菌):类脂A多为六酰化,且具有完整的双磷酸结构,与TLR4-MD2亲和力高,能够强烈激活免疫反应。
•肠道共生菌(如拟杆菌属):类脂A通常为五酰化或四酰化,并伴随去磷酸化或其他修饰,与受体结合能力较弱,炎症活性显著降低(在部分实验中可低几个数量级)。
•环境调控型细菌(如耶尔森氏菌):其类脂A结构可随温度变化而调整,在环境温度下多为低酰化形式,而在37℃宿主体内转为高酰化形式,从而增强毒性。
编辑
doi: 10.1128/mSystems.00046-17.
如上图所示,拟杆菌门(Bacteroidetes)是人类肠道微生物群中脂多糖(LPS)生物合成能力的主要贡献者。
↘ 核心多糖:连接类脂A和O抗原的保守结构
核心多糖位于类脂A和O抗原之间,主要作用是连接两个部分,它的结构相对保守,在同一属的不同细菌之间结构大多相似,含有特殊的糖分子庚糖和KDO。
核心多糖可以分为两个部分:
•内核心:靠近类脂A,含有特殊的糖分子:3-脱氧-D-甘露-辛酮糖酸(简称KDO)和L-甘油-D-甘露庚糖,这两种糖在其他地方很少见,是LPS核心多糖特征性成分。内核心结构非常保守,不同革兰氏阴性菌之间变化很小。
•外核心:连接内核心和O抗原,由己糖组成,结构比内核心变异大一些,但仍然比O抗原保守很多,同一属细菌外核心结构相似。
核心多糖带有多个负电荷,能够结合二价阳离子比如镁离子钙离子,这些阳离子中和负电荷,稳定LPS在细菌外膜的结构,如果去掉阳离子,LPS结构将变得不稳定,外膜通透性增加,细菌容易被抗菌物质杀死。
↘ O抗原:决定细菌特异性的高度变异部分
O抗原是LPS分子最外层的多糖重复单位,是LPS中变异性最大的部分,不同血清型革兰氏阴性菌O抗原结构不同,这种高度变异是细菌逃避免疫识别的重要进化策略。O抗原高度变异直接关系到细菌致病性和免疫识别,但是O抗原本身基本没有毒性,主要影响细菌免疫原性和致病性,不直接影响LPS毒性强弱。
O抗原由多个相同的寡糖重复单位聚合而成,每个重复单位通常含有2-6个糖分子,不同细菌重复单位的糖组成、排列顺序、连接方式都可以不同,所以变异非常大,理论上可以产生成千上万种不同O抗原结构。
实例:E. coli O157:H7(常见的致病性肠出血性大肠杆菌)与E. coli O26、O111等其他血清型的区别,本质上就是O抗原多糖重复单位的结构不同。有的重复单位含有不同种类的糖(葡萄糖、半乳糖等),有的糖连接方式不同(α-1,3还是β-1,4),排列顺序也不同。因此针对O157的抗体一般难以有效识别O26等其他血清型,但在个别情况下可能存在有限的交叉反应。
▸ 光滑型脂多糖和粗糙型脂多糖的差异
完整脂多糖(LPS)含有O抗原叫做光滑型LPS,缺失O抗原只剩下类脂A和核心多糖叫做粗糙型LPS,也叫脂寡糖(LOS),两者在稳定性、免疫原性和致病性上都有显著差异。
编辑
编辑
doi.org/10.3390/ijms24098395
LPS(脂多糖)结构示意图:图中亮红色的LPS锚定在革兰氏阴性(G-)细菌的外膜上。根据O抗原和核心区(core)的长度,可将LPS分为光滑型(S)、半粗糙型(SR)、粗糙型(R)和深度粗糙型(DR)。从LPS最外层到最内侧疏水部分,其结构变异性逐渐降低。
♥
▸ 脂多糖对革兰氏阴性菌生存的影响
脂多糖(LPS)不仅仅是致病因子,它对革兰氏阴性菌自身生存具有非常重要的生理功能,维持外膜结构完整性,抵抗抗菌物质入侵,保护细菌生存,虽然部分菌株即使缺失或改变LPS结构仍可存活,但是其生理功能和适应性会显著受损。
脂多糖对革兰氏阴性菌的主要生理功能:
①维持外膜结构完整性:脂多糖是革兰氏阴性菌外膜主要成分,占外膜干重三分之一以上,LPS分子通过二价阳离子交联形成稳定网状结构,维持外膜通透性和结构完整性,如果缺失LPS,外膜结构破坏,细菌存活能力下降。
②形成通透屏障抵抗抗菌物质:LPS外层亲水内层疏水,形成选择性通透屏障,能够阻挡疏水抗菌物质、胆汁盐、补体、溶菌酶进入细菌体内,保护细菌免受宿主防御物质和抗生素攻击,增加细菌耐药性。
③抵抗宿主免疫攻击:O抗原能够保护细菌不被补体激活和吞噬细胞吞噬,帮助细菌逃避免疫清除,增加细菌致病性,有O抗原的菌株更容易引起全身性感染。
④介导细菌粘附:LPS能够介导细菌粘附到宿主黏膜上皮细胞,帮助细菌定植,这是感染第一步,所以LPS对细菌定植也很重要。
因为脂多糖对细菌生存这么重要,所以几乎所有革兰氏阴性菌都必须合成LPS,只有极少数例外,比如某些衣原体可以缺失。
▸ 肠道中的脂多糖与人体屏障系统
据估计,人类结肠中含有约10¹³–10¹⁴个细菌,总生物量约为数百克(通常约0.2–0.5 kg)。这些细菌在生命活动过程中可产生脂多糖(LPS)。研究表明,以大肠杆菌为代表的革兰氏阴性菌,其单个细胞所含LPS约为几飞克至几十飞克(约2–50fg)。基于此进行粗略估算,肠道中LPS的总量大致处于几十毫克至数百毫克的范围,具体取决于菌群组成及生理状态。
然而,静脉注射LPS的致死剂量仅为1–2微克。也就是说,肠道内的LPS总量,可能是致死剂量的千倍甚至百万倍。那么为什么我们不会被”毒死”?答案在于——人体的屏障系统。
↘ 肠道屏障:把”危险”关在门外
人体的上皮组织(比如肠道内壁)在进化过程中,形成了极其高效的防御结构,能够将有害物质隔离在外。
在正常情况下,肠道细菌及其产生的LPS主要存在于肠腔内部,它们被粘液层和上皮细胞牢牢阻挡,不会接触到体内的深层组织。
研究发现,只要这些细菌停留在肠腔一侧,就不会对肠道细胞造成伤害。真正的危险发生在当LPS接触到上皮细胞”背面”(基底侧)时,毒性才会显现。
↘ 肠道屏障破坏的风险因素
当肠道屏障被破坏时,情况就会发生改变:细菌可能穿过粘液层,从细胞之间的缝隙渗透,甚至直接穿过细胞进入更深层组织。一些致病菌本身就具备”入侵能力”,可以主动突破防线。一旦细菌或大量LPS进入血液,免疫系统会迅速响应,但如果负荷过高,可能引发严重后果,比如全身炎症反应、败血症甚至败血性休克。
以下人群风险更高:
-新生儿(免疫系统尚未成熟);
-老年人或重症患者;
-免疫功能受损的人群;
-长期使用导尿管等侵入性器械者;
-肠道存在炎症、损伤或肿瘤的人。
▸ 肠道暴露导致脂多糖转移到循环中
在正常生理条件下,血浆中LPS水平极低。这是因为健康的肠道限制了LPS分子进入血液的途径。尽管持续暴露于LPS,肠细胞和结肠细胞对这些刺激表现出低反应状态,部分原因在于这些细胞中Toll样受体4(TLR4)表达较低。这种肠道耐受机制最大限度地减少了肠腔内的炎症反应。
此外,肠道微生物群中LPS的暴露在免疫系统的发育和成熟中起着关键作用,训练肠道相关淋巴组织(GALT)中的调控T细胞。个体的LPS谱系取决于肠道微生物群的组成,而肠道微生物群的组成因地理和生活方式等因素而有所变化。
▸ 脂多糖在肠道中”常态存在”的生理意义
很多人一听说脂多糖(LPS)有害,就想把肠道里的LPS彻底清除。实际上,这既不现实,也没有必要。相反,维持生理范围内的LPS暴露,对健康是有意义的。
在健康婴儿、成年人和老年人肠道菌群中,革兰氏阴性菌占有一定比例(如拟杆菌门)。这些细菌在更新过程中会不断死亡、裂解,从而释放LPS到肠腔中。因此,肠道内持续存在低水平LPS是一种正常的生理现象,而不是异常状态。生理水平的脂多糖具有以下作用:
•促进免疫系统正常发育:无菌动物由于缺乏包括LPS在内的微生物刺激,免疫系统发育不成熟,免疫应答能力不足,更容易出现过敏和自身免疫问题。适度的LPS等刺激有助于免疫系统建立“耐受”和”分辨能力”,这是”卫生假说”的重要机制基础之一。
•维持先天免疫的基础警戒状态:低水平的微生物信号可以让机体免疫系统保持”准备状态”。如果完全缺乏这类刺激,机体在真正遇到病原体时,可能反应迟缓,反而更容易感染。
•有助于睡眠:2024年发表的一项研究表明当LPS注入门静脉循环时,会引起睡眠增加和体温升高。门静脉循环负责将来自胃、小肠和大肠(这些器官中存在肠道微生物群)的血液输送到肝脏。像LPS这样的微生物分子可以通过“转位”过程进入门静脉,从而进入宿主体内环境。
编辑
事实上,在健康的人类、大鼠和小鼠体内,脂多糖天然存在于门静脉和全身循环血液中,是一种来源于原核生物的生理性血浆成分。
研究进一步暗示日常生活中的一些刺激会进一步促进LPS的转位,从而提高其在血液中的水平。例如,一顿高脂餐(如三片涂有50克黄油的吐司)可使人体血浆LPS水平升高约50%。此外,少量饮酒、急性或慢性睡眠不足以及轻度心理压力等常见情况,也都会增加循环中的LPS水平。
!
关键观点
问题不在”有没有”,而在”是否过量”。真正有害的是脂多糖异常升高并进入循环(如肠屏障受损导致的”内毒素血症”),这会诱导慢性低度炎症,进而与代谢性疾病等相关。因此,我们关注的重点不是”全部消灭LPS”,而是避免其异常升高和大量入血。
♥
▸ 肠道是人体内脂多糖的主要来源
在健康成年人中,肠道是体内LPS(脂多糖)最主要的产生和储存场所。健康成年人肠道内约有10¹³–10¹⁴数量级的微生物,其中约20%–40%为革兰氏阴性菌(以拟杆菌门为主),这些细菌在持续更新过程中不断裂解并释放LPS。
相比之下,口腔(如牙周炎时)虽也可产生LPS但总体规模较小,呼吸道和皮肤等部位菌量更低,对全身LPS贡献有限,但是注意在严重局部感染或全身感染时,这些部位也可能成为重要来源。
▸ 关键分界:是否进入循环
一个非常重要但常被忽略的点是:肠道中LPS很多≠血液中LPS一定高。
↘ 在健康状态下:
•肠道屏障(上皮细胞+紧密连接+黏液层+IgA)有效阻挡LPS进入体内;
•只有极少量LPS可进入循环;
•血浆LPS通常处于低水平(常见报道为pg/ml级别);
•这个水平属于生理暴露,不会引发系统性炎症。
↘ 何时变成问题?当出现以下情况时:
•肠道屏障受损(如”肠漏”);
•肠道菌群失衡(如革兰阴性菌过度增殖);
•高脂饮食促进LPS转运(经乳糜微粒)
就会导致进入循环的LPS增加(而不是肠道LPS本身增加才是关键),这就是所谓的代谢性内毒素血症,其特点是:
•血中LPS轻度但持续升高;
•激活TLR4等炎症通路;
•诱导慢性低度炎症;
•并与胰岛素抵抗、肥胖、非酒精性脂肪肝、动脉粥样硬化相关。
代谢性内毒素血症的经典模型认为,LPS可能进入全身循环并促进慢性炎症。该经典模型指出:
(1) 西式饮食可能增加产生LPS的细菌数量并增加脂肪吸收。
(2) LPS可在局部发挥作用并诱导炎症反应,也可通过刷状缘的移位转运以及在乳糜微粒内进入全身循环。
(3) 主要来源于肝脏的LBP与循环中LPS的脂质A部分结合。
▸ 脂多糖进入血液循环的主要途径
LPS从肠道进入血液循环主要通过两条途径:一是肠道通透性增加(肠漏)导致经细胞间隙进入循环,二是在脂肪吸收过程中结合乳糜微粒,经淋巴系统进入血液。这两条途径共同影响体内LPS的总体水平。
↘ 第一条途径:肠漏(细胞间隙通透增加)
当肠道上皮紧密连接受损,细胞间隙通透性增加,LPS可以从肠腔进入黏膜下组织,并进一步进入门静脉循环。这一过程不依赖脂肪摄入,而主要取决于肠屏障完整性。长期通透性升高,是循环LPS持续升高的重要原因之一。
↘ 第二条途径:乳糜微粒转运
LPS具有一定亲脂性。在摄入脂肪后,肠道形成乳糜微粒以吸收和运输脂类物质,部分LPS可结合在乳糜微粒上,随其进入淋巴系统,最终进入体循环。这一过程与脂肪摄入量相关:脂肪摄入越多,乳糜微粒生成越多,LPS转运量也可能相应增加。这也是高脂餐后出现”餐后内毒素血症“的一个重要机制。
这两条途径通常同时存在:肠道通透性决定基础LPS水平,而餐后乳糜微粒可造成短时升高,两者叠加,可能导致整体水平上移。
★ 短时过量脂肪摄入可能导致脂多糖过多的危害
当长期高脂摄入、频繁产生大量乳糜微粒,或肝脏清除能力下降时,可能出现LPS清除不及、循环水平升高的情况,从而与慢性低度炎症相关。
因此,并不需要避免脂肪摄入本身,而是应关注总量与分配:避免单次摄入过多脂肪,有助于降低一次性LPS负荷。只要控制每餐脂肪量,不要一次摄入太多脂肪,减少单次转运LPS量,就不会对健康造成危害,完全禁止脂肪摄入也不利于健康,关键是量和频率。
这个也解释了为什么中国人说“饱食伤身”,一次吃太多脂肪不仅热量过剩,还带来大量LPS进入循环,导致一次炎症峰,反复多次就是慢性炎症,所以吃七八分饱不仅减少热量,也减少LPS,对健康更有利。
♥
▸ 脂多糖的半衰期与清除动力学
LPS在人体内的半衰期取决于其浓度和人体解毒能力。生理低剂量LPS进入循环后,半衰期大约是几分钟到十几分钟,能够被肝脏快速清除,但是高剂量LPS超过肝脏清除能力,半衰期显著延长,能够在循环中停留几个小时,持续激活炎症。
了解半衰期能够帮助我们理解为什么低剂量持续暴露比一次性高剂量更有害,为什么慢性持续LPS升高导致慢性病。
▸ 肝脏:清除循环LPS的主要器官
进入门静脉的脂多糖约有80–90%在肝脏被清除,主要由Kupffer细胞介导,肝脏因此成为清除循环LPS的关键器官。
正常肝功能有助于维持低水平LPS,而功能受损时清除能力下降,易导致其升高。除直接吞噬外,LPS还可与LDL、HDL等血浆脂蛋白结合,并被肝细胞和Kupffer细胞摄取,从而进一步促进清除。
编辑
↘ 肝脏功能能够影响脂多糖的清除能力
因此,肝脏构成防止LPS进入体循环的重要屏障。肝功能正常,清除能力强,能够快速清除LPS,肝功能下降,清除能力下降,相同剂量LPS半衰期延长,炎症更明显,所以肝功能不好的人更容易发生内毒素血症。
编辑
▸ 肠道碱性磷酸酶对LPS的解毒作用
肠道上皮分泌的碱性磷酸酶(intestinal alkaline phosphatase, IAP)可通过去除LPS脂质A上的磷酸基团,将其转化为低毒形式,显著降低其激活TLR4-MD2受体的能力,从而减弱炎症反应。
↘ 碱性磷酸酶能够减弱脂多糖导致的炎症反应
这一过程发生于LPS进入体内之前,是肠道局部解毒的重要机制和防止系统性炎症的第一道屏障。IAP由小肠上皮刷状缘表达,直接与肠腔内LPS接触;其去磷酸化作用可使LPS炎症活性降低数十至数百倍。
动物研究表明,缺失IAP会增加对LPS的敏感性并加重炎症反应。IAP为含锌酶,锌对其结构稳定和催化活性至关重要,缺锌可降低其功能并增加活性LPS负荷。部分研究还提示,高脂饮食可能抑制IAP表达或活性,而低脂或特定膳食模式有助于维持其功能,但相关结论尚不一致。
▸ 低密度脂蛋白与脂多糖的相互作用
脂多糖(LPS)进入循环后,一部分游离存在,另一部分与低密度脂蛋白(LDL)结合。结合后,LPS的疏水结构被包埋于LDL颗粒内,减少与免疫细胞表面TLR4受体的接触,从而降低其炎症活性,这是一种机体的保护性机制。
↘ LDL与LPS的结合具有双重效应
然而,携带LPS的LDL更易被巨噬细胞通过清道夫受体摄取,促使其转化为富含胆固醇的泡沫细胞,进而在血管壁沉积形成脂纹,推动动脉粥样硬化的发生与发展。
因此,LDL与LPS的结合具有双重效应:既可降低游离LPS的炎症活性,又促进泡沫细胞形成和动脉粥样硬化进展。当LPS与LDL同时升高时,心血管风险显著增加,且两者具有协同放大效应。循环LPS水平升高会增强LDL的致动脉粥样硬化作用,这是其促进心血管疾病的重要机制之一。
▸ LPS清除的多器官协作(肝-脾-肾)
除肝脏外,脾脏和肾脏亦参与循环LPS的清除与代谢:肝脏为主要清除器官,脾脏提供辅助清除,肾脏负责排泄降解产物。整体上,网状内皮系统(单核-巨噬细胞系统)协同维持LPS稳态。
↘ 肝脏主要清除、脾脏辅助清除
进入循环的LPS大多由肝脏Kupffer细胞清除,其余部分可被脾脏巨噬细胞摄取。肾脏对完整LPS的直接清除有限,主要排泄其降解后的小分子片段,参与代谢末端处理。
LPS清除依赖单核-巨噬细胞系统的吞噬功能;当疾病、炎症或药物导致该系统功能下降时,清除效率降低、半衰期延长,循环水平升高并加重炎症反应。
总体而言,LPS清除体现多器官协同的分层防御:肝脏为核心屏障,脾脏补充清除,肾脏负责排泄。该体系功能正常时可有效控制LPS水平;若输入增加(如肠屏障受损或饮食因素)且清除能力下降(如肝功能或免疫功能减弱)并存,则可能突破防线,导致慢性低水平内毒素血症。
♥
▸ 肠道菌群失调
当肠道菌群失调时,菌群结构和代谢功能发生改变,可能导致脂多糖负荷及其炎症活性升高。肠腔中LPS水平上升,同时在饮食和屏障因素作用下进入循环的LPS增加。因此,通过改善菌群结构与代谢环境,可以从源头降低高炎症活性的LPS负荷。
健康成年人肠道中本就富含革兰氏阴性菌(如拟杆菌门)。但菌群失调(如高脂、低纤维饮食)会改变其结构,使部分菌群(尤其肠杆菌科)增加,同时短链脂肪酸等代谢产物减少,从而共同影响LPS相关效应。
不同来源的LPS免疫活性差异显著:拟杆菌来源LPS炎症活性较低,而大肠杆菌来源则更易诱导炎症。因此,关键不在于阴性菌数量多少,而在于高炎症活性LPS的比例是否上升。
↘ 在吸收方面,LPS进入循环主要通过:
•与脂质结合,经乳糜微粒转运(高脂饮食关键机制);
•肠屏障功能改变(紧密连接受损)。
因此,高脂低纤维饮食的作用是双重的:一方面改变菌群结构,另一方面显著促进LPS进入血液循环,共同提高循环LPS水平。
↘ 膳食纤维则通过不同路径发挥作用:
•促进产短链脂肪酸菌生长(如产丁酸菌);
•增强肠道屏障功能;
•调节菌群整体生态。
从而降低脂多糖相关炎症负荷。
这一机制把”菌群失调”和”慢性炎症”连接起来,但更准确的路径应理解为:
菌群失调 → LPS结构与负荷改变+代谢环境改变 → LPS更容易进入循环 → 诱导低度慢性炎症 → 胰岛素抵抗、脂肪肝、动脉硬化等问题 → 参与多种慢性疾病发生发展。
这里的关键,不是单一指标(比如阴性菌比例),而是菌群整体生态与宿主相互作用。所以,调节肠道菌群的核心,不是简单”降低革兰氏阴性菌”,而是恢复菌群结构与功能的平衡,从而降低高炎症活性的LPS负荷。
▸ 小肠细菌过度生长
正常情况下,小肠受胃酸和蠕动影响,细菌浓度远低于结肠(约10¹¹–10¹² CFU/ml的万分之一),因此LPS水平较低,即使全部吸收,总量也有限。
↘ 小肠细菌过度生长使脂多糖水平显著升高
发生小肠细菌过度生长(SIBO)时,小肠细菌增至10⁵–10⁸ CFU/ml,且多为革兰氏阴性菌,使腔内LPS浓度升高数十至上百倍。由于小肠吸收面积大、通透性高,更多LPS进入门静脉循环,导致循环水平升高。同时,SIBO还可损伤黏膜、破坏紧密连接,进一步增强LPS吸收,形成叠加效应。因此,不明原因的慢性LPS升高应考虑SIBO。
LPS的影响不仅取决于“数量”,还取决于“产生部位”:结肠产量高但吸收受限,小肠产量较低却更易入血。研究显示,SIBO患者循环LPS显著升高,根除后可下降并伴随症状改善,提示其为重要来源之一。这也解释了SIBO与多种肠外疾病的关联,即通过增加LPS吸收诱发全身慢性炎症。
▸ 牙周炎:被低估的”持续性LPS输入源”
牙周炎中,牙周袋内聚集大量革兰氏阴性厌氧菌(如牙龈卟啉单胞菌),持续释放脂多糖。在局部炎症和血管通透性增加的情况下,这些LPS可以进入血液循环,成为全身LPS负荷的长期来源之一。
很多人把牙周炎当作”口腔问题”,但忽略了一点:牙龈是一个高度血管化、长期暴露炎症的组织,这意味着,口腔里的炎症信号,是可以”进入全身”的。
↘ 牙周炎的核心环境是牙周袋:
•厌氧环境;
•大量革兰氏阴性菌;
•持续细菌更新与裂解释放脂多糖。
▸ 脂多糖与肠道屏障损伤的正反馈循环
脂多糖不仅可通过肠道进入循环,还可反过来破坏肠道屏障结构,增加通透性(”肠漏”),从而进一步促进LPS吸收,形成正反馈循环。
研究表明脂多糖可激活肠上皮细胞中的NF-κB通路,诱导炎症因子释放。这些炎症信号可导致紧密连接蛋白(如occludin、ZO-1)发生内吞和降解,从而破坏紧密连接结构。
结果是肠道通透性增加,使更多LPS从肠腔进入门静脉及全身循环。升高的LPS又进一步加重屏障损伤,形成循环:
LPS升高 → 屏障受损 → 通透性增加 → LPS吸收增加 → LPS进一步升高。
这一循环可持续放大低度慢性炎症状态。这表明一旦肠道屏障受损,单一干预往往难以逆转进程;同时降低LPS来源与修复屏障结构,可能更有助于打破这一循环。
▸ 其他升高脂多糖水平的风险因素
↘ 时间维度:停留越久→吸收越多(便秘)
便秘本质是”肠道内容物滞留”。停留时间延长→细菌裂解释放更多LPS + 与肠壁接触更久→吸收增加。同时伴随菌群失衡→进一步增加LPS来源。
结果:脂多糖”暴露时间+浓度”双升高。
↘ 屏障维度:肠道越”漏”→进入越多(压力/睡眠不足)
慢性压力通过皮质醇破坏紧密连接→肠道通透性增加。原本被阻挡的LPS更容易进入血液。同时压力还会改变菌群→增加LPS产生。
结果:LPS”通行能力”增强。
↘ 储存维度:储得越多→释放越久(肥胖)
肥胖不是单纯”多脂肪”,而是一个LPS放大系统:脂肪组织储存LPS并持续释放;菌群失调→产生更多LPS;肠道屏障变差→吸收更多LPS。
编辑
结果:LPS”长期维持在高水平”。
↘ 生活方式和饮食因素
多种生活方式和饮食因素通过”增加LPS产生+增加LPS吸收“两条路径,提高体内LPS水平:
•高脂饮食:一方面促进乳糜微粒把LPS带入血液,另一方面改变菌群增加革兰阴性菌→LPS显著升高。
•过量饮酒:破坏肠道屏障(肠漏)+ 改变菌群→更多LPS进入血液,加重肝脏炎症。
•吸烟:影响口腔和肠道菌群+ 破坏屏障→多来源增加LPS。
•膳食纤维不足:有益菌减少、短链脂肪酸下降→菌群失衡+ 屏障变差→LPS升高。
•长期抗生素:杀死有益菌、促使阴性菌占优势+ 损伤屏障→LPS增加。
♥
▸ LPS与TLR4的识别与信号传导
LPS通过与细胞膜上的Toll样受体4(TLR4)复合物结合,激活先天免疫细胞,其生物学效应由此启动。作为典型的病原体相关分子模式(PAMP),LPS被TLR4这一模式识别受体特异性识别。
↘ 脂多糖的识别过程需要多种蛋白质协同作用:
•LPS结合蛋白(LBP):首先结合循环中的游离LPS,从聚集体中提取LPS分子,并将其运输至CD14;
•CD14:将LPS转移至TLR4-MD2复合物;
•TLR4-MD2复合物:MD2蛋白结合LPS的脂肪酸A部分。结合后,MD2发生构象变化,导致TLR4二聚化并启动下游信号转导。
▸ TLR4多态性影响LPS敏感性与疾病风险
TLR4基因多态性(如Asp299Gly、Thr399Ile)可改变受体结构,降低其与LPS的结合亲和力和敏感性,从而减弱炎症反应,并影响慢性疾病的易感性。
因此,在相同脂多糖水平下,不同个体的炎症程度和疾病风险可存在显著差异。携带这些变异的个体炎症反应较低,动脉粥样硬化风险可能下降,但对革兰氏阴性菌感染的易感性及严重脓毒症风险增加,体现出权衡效应。相反,无变异者对LPS更敏感,更易发生强烈炎症反应及相关慢性疾病,需要更积极地控制LPS水平。
除上述多态性外,其他遗传变异亦参与调控LPS敏感性,共同决定个体差异。这也反映了遗传与环境的相互作用:环境决定暴露水平,遗传决定反应强度,两者共同影响疾病风险。
编辑
doi.org/10.3390/ijms24098395
▸ 脂多糖的免疫识别与炎症激活
↘ 识别与递呈(胞外阶段)
LPS在循环中先由脂多糖结合蛋白(LBP)结合并单体化,随后转移至CD14(mCD14或sCD14),再递交给TLR4-MD2复合物。MD2结合脂质A后诱导TLR4二聚化,启动信号转导。LBP和CD14提高了系统对低浓度LPS的敏感性。
↘ 两条主要信号通路(TLR4下游)
MyD88依赖通路(主要炎症通路):通过IRAK–TRAF6–TAK1–IKK级联,激活NF-κB,诱导TNF-α、IL-1β、IL-6等促炎细胞因子产生,是LPS炎症反应的核心机制。
TRIF依赖通路:在内体中激活TBK1–IRF3,诱导I型干扰素(IFN-α/β)产生,并促进共刺激分子表达,连接先天免疫与适应性免疫。
↘ 细胞内识别与炎症放大
NOD样受体(Nod1/Nod2)识别细菌肽聚糖成分(不是直接识别LPS),通过RIP2激活NF-κB,与TLR4信号协同放大炎症反应。
↘ 炎症小体激活(第二放大机制)
LPS作为”第一信号”诱导NLRP3和pro-IL-1β表达;ATP等作为”第二信号”激活炎症小体,caspase-1剪切成熟IL-1β,进一步放大炎症级联反应。
↘ 核心转录调控节点
NF-κB是关键汇聚点,几乎所有LPS诱导的促炎基因均依赖其激活,是慢性炎症持续存在的核心分子基础。
↘ 主要效应分子
TNF-α、IL-1β、IL-6共同介导LPS的炎症效应;CRP为IL-6驱动的临床替代指标,常用于炎症监测。
↘ 剂量决定结局
低剂量长期暴露:持续激活NF-κB → 慢性低级别炎症 → 代谢性疾病等。
高剂量急性暴露:细胞因子风暴 → SIRS/脓毒性休克。
♥
▸ 脂多糖与动脉粥样硬化
通常认为胆固醇是动脉粥样硬化的主要原因,但往往忽视了炎症因素,尤其是LPS对内皮细胞的直接激活作用。
血管内皮细胞表达TLR4和CD14。LPS与TLR4结合后激活NF-κB信号通路,诱导细胞间黏附分子-1(ICAM-1)和血管细胞黏附分子-1(VCAM-1)的表达。这些黏附分子为循环中的单核细胞和淋巴细胞提供黏附位点。
↘ 脂多糖作用于内皮细胞促进动脉粥样硬化
黏附的白细胞随后穿越内皮进入血管壁,单核细胞分化为巨噬细胞,摄取氧化低密度脂蛋白(oxLDL),形成泡沫细胞。泡沫细胞的聚集构成脂肪纹,这是动脉粥样硬化的早期病变。
此外,LPS还可诱导内皮细胞产生促炎细胞因子(如TNF-α、IL-6),进一步促进炎症反应、白细胞浸润及血管平滑肌细胞增殖,加速病变进展。
同时,LPS可通过增加活性氧生成、减少一氧化氮(NO)生物利用度,引发内皮功能障碍,表现为血管舒张能力下降及促凝状态增强。
因此,持续升高的LPS水平可通过直接作用于内皮细胞,促进动脉粥样硬化的发生和发展。
▸ 脂多糖与2型糖尿病及胰岛素抵抗
长期升高的循环LPS可激活脂肪组织、肝脏等处的巨噬细胞,促使其分泌TNF-α、IL-6等炎症因子。这些因子通过激活丝氨酸/苏氨酸激酶,促进IRS-1发生丝氨酸磷酸化,从而抑制其正常的酪氨酸磷酸化,阻断胰岛素信号传导,导致胰岛素抵抗。
↘ 降低脂多糖可改善胰岛素敏感性并降低血糖
在此状态下,β细胞需代偿性分泌更多胰岛素以维持血糖,但长期负担会导致功能衰竭,最终发展为2型糖尿病。研究表明,2型糖尿病患者循环LPS水平显著升高,而降低LPS可改善胰岛素敏感性并降低血糖,支持其在发病中的关键作用。
因此,糖尿病管理不应仅关注血糖,还应调节肠道菌群,从源头降低LPS水平。该机制也解释了部分体重正常者患病的原因:即使无肥胖,若存在菌群失调和LPS升高,仍可诱发炎症和胰岛素抵抗。对肠道菌群及LPS风险的评估,有助于实现更早期干预与预防。
▸ 脂多糖与非酒精性脂肪性肝病
肠道来源的脂多糖经门静脉直接进入肝脏。肝脏中的库普弗细胞高表达Toll样受体4(TLR4),可识别LPS并激活NF-κB信号通路,进而释放TNF-α、IL-1β等促炎细胞因子。
这些炎症因子一方面抑制肝脏胰岛素信号通路,降低脂肪酸氧化能力,促进甘油三酯在肝细胞内沉积,从而加重脂肪变性;另一方面可激活肝星状细胞,促进胶原合成和细胞外基质沉积,推动肝纤维化进展。
随着炎症持续存在,疾病可由单纯性脂肪肝逐步发展为非酒精性脂肪性肝炎(NASH),甚至进一步进展为肝纤维化和肝硬化。
↘ NAFLD患者存在脂多糖水平显著升高
研究显示,非酒精性脂肪性肝病(NAFLD)患者的门静脉及循环LPS水平显著升高;而降低LPS水平可减轻肝脏炎症反应,改善脂肪变性及纤维化程度,进一步支持LPS在NAFLD中的关键作用。
这一机制同样解释了为什么部分不超重、无饮酒史的人群仍会发生NAFLD:即使没有传统代谢风险因素,肠道菌群失调导致的LPS升高,依然可以驱动肝脏炎症和疾病进展。
▸ 脂多糖与高血压
↘ 脂多糖通过减少NO生成提高血管张力并升高血压
脂多糖可激活血管内皮细胞NF-κB通路,诱导促炎因子释放,并抑制内皮型一氧化氮合酶(eNOS)表达与活性,减少NO生成。NO减少会削弱血管舒张、增强收缩,进而提高血管张力并升高血压。
同时,LPS可损伤内皮结构、增加血管壁僵硬度和外周阻力;长期炎症还促进血管重构,使高血压逐渐固定化。动物研究表明,慢性低剂量LPS可升高血压,而降低LPS水平有助于改善血压,支持其在血压调控中的作用。
▸ 脂多糖与肥胖的相互促进
肥胖可促进脂肪组织炎症和脂多糖蓄积,而LPS介导的炎症又进一步干扰能量代谢、促进脂肪储存,二者形成相互促进的正向循环。
编辑
↘ 脂多糖干扰能量代谢、肥胖又促进脂多糖积累
此外,LPS还可能通过影响下丘脑能量调节,干扰食欲和能量摄入,进一步推动体重增加。
研究表明,减重可降低脂肪组织炎症和LPS负荷,改善胰岛素敏感性,从而有助于打破这一循环。
这一循环提示,单纯依赖热量限制可能不足以优化代谢状态;若同时改善肠道菌群、降低LPS水平,可能更有助于提高减重效果和代谢改善程度。
▸ 脂多糖与神经系统疾病
循环LPS能够通过多种途径穿过血脑屏障进入脑实质,激活小胶质细胞产生炎症,所以外周LPS升高能够影响中枢神经系统功能,参与神经精神疾病发生发展。
LPS分子量大约10-20 kDa,属于大分子,但是研究证实,循环LPS能够穿过血脑屏障进入脑内,主要通过几个途径:
•血脑屏障上有特定转运系统:能够转运LPS进入脑内,低浓度LPS就能够转运;
•炎症能够破坏血脑屏障完整性:LPS本身引发外周炎症,炎症介质破坏血脑屏障,更多LPS能够进入脑内,形成恶性循环;
•绕过血脑屏障:LPS能够通过血脑屏障薄弱部位比如延髓最后区进入脑内,然后扩散到其他脑区。
↘ 脂多糖入脑激活小胶质细胞致炎
进入脑内的脂多糖能够激活小胶质细胞,小胶质细胞是脑内巨噬细胞,表达TLR4,激活后产生促炎细胞因子,引发神经炎症,损伤神经元,所以外周LPS升高能够增加中枢神经炎症,参与抑郁症、帕金森病、阿尔茨海默病发生发展。
LPS能够穿过血脑屏障进入中枢这个事实,把外周肠道LPS和中枢神经疾病连接起来了,肠道菌群失调→LPS升高→进入中枢→激活小胶质细胞→神经炎症→神经精神疾病,这个完整通路现在已经被越来越多研究证实,这就是”肠脑轴”重要分子机制,所以改善肠道菌群降低LPS,能够帮助预防和改善神经精神疾病。
这一机制也解释了为什么肠道菌群失调能够影响情绪和认知,脂多糖进入中枢激活炎症就是重要介导。
编辑
doi.org/10.1021/acschemneuro.8b00733
♥
1
质谱检测
脂质A中的脂肪酸为3-羟基脂肪酸(3OH-FAs),其链长和酰化模式具有多样性,并可能影响LPS的免疫原性。
由于酯化的3OH-FAs仅来源于脂质A,因此其水平可作为循环中LPS的替代指标。早期采用GC/MS对其进行分离和定量;近年来发展出HPLC/MS/MS方法,通过计算总3OH-FAs与游离3OH-FAs的差值来定量酯化部分,从而实现更高灵敏度和准确性的LPS检测。
2
血浆脂多糖定量
血浆LPS定量检测是评估内毒素血症的重要方法之一,常用鲎试验(LAL)可用于检测血浆中LPS水平,反映循环内毒素负荷。
LAL试验基于鲎变形细胞溶解物对LPS的反应,可通过比浊或显色方法进行定量,检测灵敏度可达皮克级别。
↘ 但需要注意:
血浆中存在多种干扰因素(如脂蛋白、蛋白结合等),可能影响检测结果,因此不同实验条件下数值存在一定变异。
不同研究中报告的参考范围有所差异,临床上更常用于相对变化和趋势评估,而非绝对诊断标准。血浆LPS检测可用于研究或特定情况下评估内毒素水平变化,但在实际应用中通常需要结合其他指标综合判断。
3
炎症标志物间接反映
脂多糖可激活免疫系统,诱导IL-6等炎症因子释放,进而促进肝脏合成CRP,因此CRP和IL-6可以反映炎症反应水平。但需要强调的是CRP和IL-6是非特异性炎症指标,会受到感染、损伤、慢性疾病等多种因素影响。
在排除急性感染等因素的前提下,CRP(尤其hs-CRP)可以作为低度慢性炎症的实用监测指标,用于跟踪干预效果,但不能单独用于判断LPS水平。
4
肠道菌群检测推断LPS产生潜力
通过16S rRNA或宏基因组测序分析肠道菌群组成,可以从菌群结构角度推断LPS产生潜力,用于评估风险趋势。
LPS来源于革兰氏阴性菌,因此其相对丰度与LPS产生潜力相关,但这种关系是间接的、受多因素影响。
例如:
拟杆菌门虽为革兰阴性,但其LPS炎症活性差异较大,并非全部强致炎;
菌群功能、宿主状态、屏障功能等都会影响最终LPS水平;
菌群检测更适合用于风险评估和干预方向指导,而不是直接判断LPS实际水平。
5
谷禾健康肠道菌群检测评估LPS相关风险
谷禾报告对很多菌群多指标整合分析,可以更系统地评估LPS相关风险趋势,用于指导个体化干预。我们方法的价值在于从菌群结构和功能角度提供参考信息,但仍需结合临床指标(如炎症指标、代谢指标)综合判断。
↘ 高LPS风险的菌群特征
谷禾报告中高LPS风险通常表现为革兰氏阴性菌相对丰度偏高,伴随促炎菌增加、短链脂肪酸产生菌减少及综合评分升高,提示较高的LPS产生与炎症潜力。
典型特征包括:
•革兰氏阴性菌相对丰度升高→LPS来源增加(潜力增加);
•B/F比值升高→菌群结构向阴性菌倾斜;
•促炎革兰氏阴性菌增加→LPS炎症活性增强;
•短链脂肪酸产生菌减少→抗炎能力下降+屏障支持减弱;
•综合风险评分偏高→多因素叠加的结果。
这些特征反映的是LPS相关风险升高的趋势,提示需要从菌群和生活方式层面进行干预。
↘ 低LPS风险的菌群特征
低LPS风险通常表现为菌群结构相对平衡、短链脂肪酸产生能力良好、综合评分较低,提示LPS产生和炎症风险较低。
主要特征包括:
•革兰氏阴性菌比例在合理范围→LPS来源稳定;
•B/F比值平衡→菌群结构稳定;
•促炎致病菌未见明显富集→炎症驱动较低;
•短链脂肪酸产生菌充足→有助于抗炎和维持屏障;
•综合评分低→整体风险较低
低风险代表当前状态良好,但仍需维持健康饮食和生活方式以保持稳定。
6
结合肠道通透性综合评估LPS
LPS风险评估需要同时考虑“产生”和”吸收”两方面,即菌群结构与肠道通透性共同决定循环LPS水平。
关键理解三种情况:
•屏障受损(肠漏)时→即使LPS产生不高,也可能吸收增加;
•屏障正常时→即使LPS产生略高,进入血液的量可能有限;
•两者同时异常→LPS升高风险最大。
综合评估可以区分问题来源(“产多了”还是”漏多了”),从而更有针对性地干预,例如侧重调菌或修复屏障。
♥
1
修复肠道屏障—减少LPS吸收的根本措施
无论LPS升高的原因如何,修复肠道屏障是降低其进入循环的根本措施。完整的肠道屏障通过维持上皮细胞间的紧密连接,阻止LPS经细胞间隙进入血液;当屏障受损时,紧密连接蛋白减少、通透性增加,LPS更易入血。因此,恢复紧密连接完整性可有效减少LPS吸收并降低其循环水平。
①补充乳铁蛋白
乳铁蛋白是一种铁结合糖蛋白,可促进肠上皮细胞增殖与更新,维持紧密连接蛋白表达和屏障完整性,从而降低肠道通透性,减少LPS进入循环并降低其水平。
此外,乳铁蛋白具有特异性LPS结合结构域,能高亲和力结合并中和LPS,阻断其与免疫细胞膜TLR4受体结合,抑制下游炎症信号通路,减少促炎因子产生,从而直接抑制炎症反应。
②补充谷氨酰胺
肠上皮细胞更新迅速,需充足谷氨酰胺供能;其充足时可维持上皮更新和紧密连接蛋白合成,保持屏障完整与正常通透性,减少LPS经细胞间隙入血。
肠漏或屏障受损时,补充谷氨酰胺可促进上皮修复、增强紧密连接、降低通透性,从而减少LPS吸收,对此类人群尤为有益。
2
其他减少LPS吸收与转运的措施
①维生素D
可以上调紧密连接蛋白,降低肠道通透性,减少LPS跨上皮转运。
②改善便秘
缩短肠道转运时间,减少LPS在肠腔内累积及与肠壁接触时间,从而降低吸收机会。
③减轻压力+改善睡眠
通过降低HPA轴激活和皮质醇水平,改善紧密连接与肠屏障功能,减少LPS进入循环。
3
减少其他LPS产生来源
①治疗SIBO
小肠细菌过度生长增加潜在LPS来源,在肠屏障受损时更易转化为循环LPS,抗生素等针对性治疗可降低细菌负荷,从源头减少LPS产生。
②牙周治疗
牙周感染中革兰阴性菌持续释放LPS,可通过受损牙龈进入循环,系统治疗减少这一持续输入源。
4
控制每餐脂肪摄入
我们之前介绍过,吃完脂肪后,肠道合成乳糜微粒运输脂肪,LPS亲脂,结合到乳糜微粒上,随乳糜微粒进入淋巴循环,然后进入体循环,因此每餐脂肪越多,合成的乳糜微粒越多,进入循环的LPS越多,所以控制每餐脂肪量减少乳糜微粒,进而减少进入循环的LPS,降低循环LPS水平。
简单饮食调整:一餐不要吃太多脂肪,全天均匀分布脂肪,可以减少餐后LPS升高,减少累积炎症。
5
增加膳食纤维,黄酮、多酚等摄入
①芹菜素(apigenin)
芹菜素是一种广泛存在于温热带蔬果中的黄酮类化合物,在芹菜、洋甘菊和欧芹中含量较高,具有肠道靶向的抗炎作用。
其可调节肠道菌群、强化肠道屏障,从而减少LPS吸收;在高脂饮食诱导的肥胖模型中,补充芹菜素可显著降低全身LPS水平及相关低度炎症。
②菊粉(Inulin)
益生元纤维如菊粉可促进抑制LPS的共生菌生长,并增加短链脂肪酸(SCFAs)生成,从而修复肠黏膜。
在一项针对2型糖尿病女性的随机对照试验中,补充菊粉8周使血浆LPS较安慰剂下降27.9%,同时炎症因子和胰岛素抵抗显著改善。
这些效应主要归因于其对肠道菌群的调节和对紧密连接蛋白的增强,从而抑制LPS易位,表明膳食纤维是降低内毒素血症和炎症的可行策略。
③利福昔明
利福昔明是一种肠道特异性抗生素,针对革兰氏阳性和革兰氏阴性菌,且不进行全身吸收。通过重塑肠道微生物群,利福昔明可以降低内源性内毒素的产生。
在非酒精性脂肪性肝炎(NASH)患者中,28天的利福昔明治疗显著降低了血清内毒素水平(内毒素活性下降,P=0.03),同时肝酶和炎症标志物也有所改善。
④姜黄素
姜黄素可通过强化肠道屏障并解毒内毒素,减少LPS介导的炎症。在饮食诱导的代谢综合征啮齿动物模型中,姜黄素提高肠道碱性磷酸酶活性(去磷酸化并中和LPS),维持紧密连接结构,从而防止血浆LPS升高。
在高脂饮食的糖尿病大鼠中,姜黄素可使升高的血清LPS和TNF-α恢复至正常水平。这些作用与其重塑肠道菌群(增加有益菌)及直接抑制LPS诱导的肠道信号通路有关。初步人体研究亦支持其作为辅助干预,用于降低代谢疾病中的内毒素血症和炎症。
⑤膳食纤维的综合作用
膳食纤维不被人体消化,进入结肠后作为双歧杆菌、乳杆菌等革兰阳性有益菌的发酵底物,促进其增殖并相对降低革兰阴性菌比例,从而减少LPS生成。
有益菌发酵产生的短链脂肪酸具有抗炎作用并增强肠道屏障,降低LPS吸收,形成双重降LPS效应。其中丁酸盐既是能量来源,又可强化屏障功能,是膳食纤维降低LPS的重要机制之一。
6
调节肠道菌群,选择合适的益生菌
①从源头调整肠道菌群减少脂多糖产生
LPS由肠道革兰氏阴性菌产生;其比例升高会增加LPS生成。通过饮食调节促进革兰氏阳性有益菌生长、降低阴性菌比例,可从源头减少LPS产生并降低其循环水平,这种改变具有长期稳定性。
益生菌和益生元均有助于调节菌群,因此饮食干预是更为根本且可持续的策略。相比单纯依赖抗炎药物,从源头控制菌群更能长期维持LPS在正常水平,促进整体健康。
②施用以革兰氏阳性菌为主的益生菌
选择的益生菌应该以双歧杆菌、乳杆菌等革兰氏阳性菌为主,这些本身没有LPS细胞壁,不会给肠道额外增加LPS,同时抑制革兰氏阴性菌过度生长,减少总LPS产生。
避免选择含有大量革兰氏阴性菌的益生菌产品,这些会给肠道额外增加LPS,增加LPS负担,反而达不到降低LPS的效果。
7
抑制LPS诱导的炎症反应
①Omega-3脂肪酸
改变细胞膜结构与脂筏环境,影响TLR4信号复合体激活,并通过resolvins等介质促进炎症消退,从而减轻LPS炎症反应。
②小剂量阿司匹林
通过COX抑制及NF-κB通路调节发挥整体抗炎作用,同时抑制血小板聚集,降低LPS相关心血管风险(主要为系统性抗炎效应的一部分)。
8
减少脂肪组织LPS蓄积
LPS亲脂容易蓄积在脂肪组织中,脂肪组织质量越大,蓄积LPS总量越多,脂肪组织不断缓慢释放LPS进入循环,维持循环LPS持续低水平升高,减肥减少脂肪组织质量,LPS蓄积总量减少,释放进入循环的LPS减少,循环LPS水平下降。
减肥同时改善肠道菌群,减少革兰氏阴性菌比例,进一步减少LPS产生,多重机制共同降低循环LPS水平,因此肥胖症减少体重可以显著降低LPS水平。
9
不同LPS风险分层个体化干预策略
不同LPS风险程度需要不同强度干预策略,低风险维持健康生活方式,中风险饮食调整加针对性营养补充,高风险先排查继发性疾病针对性治疗,个体化干预更高效。
•低LPS风险:不需要特殊药物干预,维持低LPS饮食模式和健康生活方式,几个月复查一次即可,长期维持可以稳定保持低LPS。
•中度LPS风险:饮食调整基础上,针对性补充营养补充剂,比如益生元、益生菌、乳铁蛋白,根据是否存在屏障损伤选择修复屏障营养,3-6个月复查调整方案。
•显著LPS风险:先排查继发性疾病,常见继发性疾病是SIBO、牙周病、便秘,针对性治疗继发性疾病,治疗后继续生活方式维持。
根据风险分层选择不同干预强度,避免低风险过度干预浪费金钱扰乱菌群,高风险干预不足达不到效果,个体化分层干预平衡效果和安全性,更合理高效。
♥
很多人从未关注过脂多糖(LPS),也很少意识到它与常见慢性疾病之间的联系。通过本文的系统梳理,我们从结构、机制到疾病,再到干预路径,已经建立起一个相对完整的认知框架。
⑴脂多糖的基本特性
脂多糖由脂质A、核心多糖和O抗原构成,其中脂质A是主要的免疫活性结构。其物理化学性质较为稳定,一般灭菌手段难以完全去除其活性。
⑵代谢与清除路径
脂多糖主要来源于肠道菌群。正常情况下,肠道屏障可以限制其大量进入体内;进入循环后的LPS主要由肝脏清除。部分研究提示,脂肪组织在一定程度上也可参与LPS相关过程。
⑶致病机制
LPS可通过TLR4被机体识别,激活先天免疫系统,诱导TNF-α、IL-6等促炎因子释放。当这种激活处于长期低水平状态时,可对多组织产生慢性损伤。
⑷疾病关联
脂多糖升高与多种慢性疾病存在相关性,包括代谢综合征、2型糖尿病、非酒精性脂肪肝(NAFLD)、动脉粥样硬化、高血压、肥胖,以及部分神经系统疾病和自身免疫疾病等。但其作用通常是多因素共同参与的一部分。
⑸脂多糖升高的常见因素
高脂饮食、过量饮酒、吸烟、膳食纤维摄入不足、长期使用广谱抗生素,以及SIBO、牙周炎、便秘、慢性压力、睡眠不足和肥胖等,都可能通过不同路径影响脂多糖水平。
⑹检测与评估方式
脂多糖可以通过血浆检测进行评估,同时CRP等炎症指标可作为间接参考。结合肠道菌群检测,有助于从“产生—吸收—炎症反应”多个维度综合评估风险。
⑺干预基本原则
围绕三个核心方向展开:
•减少产生(调节菌群);
•减少吸收(修复肠道屏障);
•减少转运与炎症反应(饮食与系统状态调节)。
同时,对于SIBO、牙周炎等明确来源,应进行针对性处理,并结合个体情况进行分层干预。
脂多糖(LPS)是革兰氏阴性菌细胞壁的特有成分。在正常生理状态下,少量脂多糖进入循环,有助于维持基础免疫激活。
但当多种因素叠加,导致循环中LPS长期处于偏高水平时,机体会进入一种“慢性低度炎症状态”,这一状态被认为与多种慢性疾病的发生发展密切相关。因此,长期维持LPS在合理范围内,是慢性疾病预防与管理中一个值得关注的重要环节。
主要参考文献
Wassenaar TM, Zimmermann K. Lipopolysaccharides in Food, Food Supplements, and Probiotics: Should We be Worried? Eur J Microbiol Immunol (Bp). 2018 Aug 21;8(3):63-69.
Kim HS, Kim S, Shin SJ, Park YH, Nam Y, Kim CW, Lee KW, Kim SM, Jung ID, Yang HD, Park YM, Moon M. Gram-negative bacteria and their lipopolysaccharides in Alzheimer’s disease: pathologic roles and therapeutic implications. Transl Neurodegener. 2021 Dec 7;10(1):49.
Magdaleno F, Blajszczak CC, Nieto N. Key events participating in the pathogenesis of alcoholic liver disease. Biomolecules. 2017;7:pii:E9.28134813.
Gomes JM, Costa JA, Alfenas RC. Metabolic endotoxemia and diabetes mellitus: A systematic review. Metabolism. 2017;68:133–44.
Roth J, Blatteis CM. Mechanisms of fever production and lysis: lessons from experimental LPS fever. Compr Physiol. 2014;4:1563–604.
Tume R, El Sherbiny S, Bono R, Gautier T, Pais de Barros JP and Meroño T (2025) The balance between proinflammatory, “bad”, and immunomodulatory, “good”, lipopolysaccharide for understanding gut-derived systemic inflammation. Front. Immunol. 16:1588129.
Catorce MN, Gevorkian G. LPS-induced murine neuroinflammation model: main features and suitability for pre-clinical assessment of nutraceuticals. Curr Neuropharmacol. 2016
Laugerette F, Vors C, Peretti N, Michalski MC. Complex links between dietary lipids, endogenous endotoxins and metabolic inflammation. Biochimie. 2011;93:39–45
Neyen C, Lemaitre B. Sensing Gram-negative bacteria: a phylogenetic perspective. Curr Opin Immunol. 2016;38:8–17.
Candelli, M.; Franza, L.; Pignataro, G.; Ojetti, V.; Covino, M.; Piccioni, A.; Gasbarrini, A.; Franceschi, F. Interaction between Lipopolysaccharide and Gut Microbiota in Inflammatory Bowel Diseases. Int. J. Mol. Sci. 2021, 22, 6242.
Szentirmai, É., Buckley, K., Massie, A.R. et al. Lipopolysaccharide-mediated effects of the microbiota on sleep and body temperature. Sci Rep 14, 27378 (2024).
Citronberg JS, Curtis KR, White E, Newcomb PA, Newton K, Atkinson C, Song X, Lampe JW, Hullar MA. Association of gut microbial communities with plasma lipopolysaccharide-binding protein (LBP) in premenopausal women. ISME J. 2018 Jun;12(7):1631-1641.
Lin TL, Shu CC, Chen YM, Lu JJ, Wu TS, Lai WF, Tzeng CM, Lai HC, Lu CC. Like Cures Like: Pharmacological Activity of Anti-Inflammatory Lipopolysaccharides From Gut Microbiome. Front Pharmacol. 2020 Apr 30;11:554.
d’Hennezel E, Abubucker S, Murphy LO, Cullen TW. Total Lipopolysaccharide from the Human Gut Microbiome Silences Toll-Like Receptor Signaling. mSystems. 2017 Nov 14;2(6):e00046-17.
Apigenin Alleviates Obesity-Associated Metabolic Syndrome by Regulating the Composition of the Gut Microbiome.. Qiao Y, Zhang Z, Zhai Y, Yan X, Zhou W, Liu H, Guan L and Peng L. (Front. Microbiol. 12:805827. (2022))
Orange juice neutralizes the proinflammatory effect of a high-fat, high-carbohydrate meal and prevents endotoxin increase and Toll-like receptor expression.. Ghanim H, Sia CL, Upadhyay M, Korzeniewski K, Viswanathan P, Abuaysheh S, Mohanty P, Dandona P.. (Am J Clin Nutr. 2010 Apr;91(4):940-9.)
Oral spore-based probiotic supplementation was associated with reduced incidence of post-prandial dietary endotoxin, triglycerides, and disease risk biomarkers.. McFarlin BK, Henning AL, Bowman EM, Gary MA, Carbajal KM.. (World Journal of Gastrointestinal Pathophysiology. 2017;8(3):117-117.)
Effect of Probiotic Supplementation on Intestinal Permeability in Overweight and Obesity: A Systematic Review of Randomized Controlled Trials and Animal Studies.. DiMattia Z, Damani JJ, Van Syoc E, Rogers CJ.. (Adv Nutr. 2024 Jan;15(1):100162.)
Inulin controls inflammation and metabolic endotoxemia in women with type 2 diabetes mellitus: a randomized-controlled clinical trial.. Dehghan P, Gargari BP, Jafar-Abadi MA, Aliasgharzadeh A.. (Int J Food Sci Nutr. 2014 Feb;65(1):117-23.)
Efficacy of rifaximin on circulating endotoxins and cytokines in patients with nonalcoholic fatty liver disease.. Gangarapu, Venkatanarayanaa; Ince, Ali Tüzüna; Baysal, Birola; Kayar, Yusufa; Kiliç, Ulkanb; Gök, Özlemb; Uysal, Ömerc; Şenturk, Hakana.. (European Journal of Gastroenterology & Hepatology 27(7):p 840-845, July 2015.)
Rifaximin: beyond the traditional antibiotic activity.. Calanni, F., Renzulli, C., Barbanti, M. et al.. (J Antibiot 67, 667–670 (2014).)
Improvement of intestinal barrier function, gut microbiota, and metabolic endotoxemia in type 2 diabetes rats by curcumin.. Huang J, Guan B, Lin L, Wang Y.. (Bioengineered. 2021 Dec;12(2):11947-11958.)
谷禾健康
随着全球人口老龄化加速,老年人多病共存与多重用药已成为常态,这给药物疗效和安全性带来了巨大挑战。
多药联用本身在控制多重危险因素、降低心脑血管事件方面具有明确获益;很多研究指出,多种药同时使用,住院、药物不良反应与全因死亡等风险往往显著上升。更棘手的是,在老年多病共存背景下,传统以单药证据为核心的处方逻辑,在面对真实世界的系统扰动时发现,同样方案,有人获益明显,有人疗效不足,甚至在疗效不佳的同时不良反应频发。
过去我们多从肝肾功能衰退、体成分变化、血浆蛋白结合率下降、受体敏感性改变,以及药物—药物相互作用来解释这种不确定性。但近十年的研究逐渐揭示一个被低估的关键变量:肠道菌群。
肠道菌群不仅能直接参与药物的转化、活化或灭活,还可通过代谢物谱改变、炎性衰老与屏障变化,沿着“代谢—免疫—屏障”三轴形成相互强化的级联反应,从而在药代动力学与药效学层面共同放大疗效波动与毒性风险。
基于此,本文围绕肠道菌群失调这一关键因素,阐述其通过”代谢—免疫—屏障“三轴相互作用,在老年多病共存与多重用药的临床背景下,对药物吸收、代谢和疗效的影响机制,并从代表性药物和治疗场景出发,阐明临床防治要点,为后续高质量试验设计与标准化评价体系的建立提供一些思考。
我们正处在一个不可逆转的全球老龄化时代。根据联合国的预测,到2050年,全球65岁以上的人口将占总人口的16.3%。
老年人普遍多病共存
世界卫生组织(WHO)将多病共存定义为”同一人体内存在两种或两种以上慢性疾病“。这听起来像是一个简单的数学叠加,实则是复杂的生物学重构。
流行病学数据显示,老年人群多病共存的患病率从15%-43%不等,且呈指数级增长。在我们国内,随着疾病谱从传染性疾病向慢性非传染性疾病转型,”高血压+糖尿病+冠心病+脑卒中“的组合已成为老年内科门诊的标准配置。
多药联用的益处和风险
为了管理多种慢性病,患者往往需要服用多种处方药。多药联用本身并非坏事。对于控制多重危险因素、预防心脑血管事件具有明确获益。但当药物数量超过5种时,风险陡然上升,例如住院率增加、药物不良反应增加、全因死亡风险上升。
在老年多病背景下,传统以单药证据为核心的处方逻辑,面对真实世界的系统扰动时,疗效与安全性的方差显著增大。
当多病共存遇上多重用药,药物的疗效和安全性变得极不确定。药物之间可能相互作用,而复杂的生理状况也让药物反应变得难以预测。这正是当前老年医学面临的核心难题之一。
传统观点认为,老年药代动力学改变主要源于肝肾功能衰退、脂肪/肌肉比例变化、血浆蛋白结合率下降。但近十年的研究揭示,肠道菌群构成了药物代谢的第三维度,在多药联用的老年人群中,这一维度的变异可能是疗效不确定性的最大来源。
肠道菌群:老年患者用药难题的关键一环
近年来的研究逐渐明确,肠道菌群不仅与消化相关,还深度参与免疫调控、代谢稳态与屏障维护。在老年人群中,其临床意义被进一步放大,原因主要有三点:
-个体差异更大
老年人因咀嚼/吞咽能力、胃肠动力、饮食结构与营养摄入能力变化,微生物群组成在个体间波动更明显。
-易受药物与疾病共同扰动
多病共存导致慢性炎症与器官轴(如肠-肝、肠-心、肠-肺)改变;多重用药(尤其抗生素、PPI、免疫抑制/抗肿瘤药物等)可改变群落结构与代谢功能。
特定药物和药物类别对肠道菌群影响的总结
编辑
doi: 10.1080/19490976.2025.2604867
-对药物治疗的影响:机制叠加而非单点效应
既往研究常把菌群影响分为三类来讨论。
问题在于:对老年多病共存患者而言,上述三类效应往往不是并列发生,而是形成相互强化的级联反应。也就是说,微生态失衡并非仅改变某一个药物的代谢,而是通过“代谢—免疫—屏障”三系统的协同失代偿,塑造一个对药物治疗不利的内环境:疗效更易不足,毒性更易放大,且波动更难预测。
下一章节,我们来详细了解代谢—免疫—屏障,它如何形成自我维持的恶性循环,并如何在药代/药效层面制造难以预测的真实世界差异。
在老年多重慢病与多重用药背景下,肠道微生态的紊乱正成为影响药物反应变异的新兴决定因素。菌群的异常不再局限于单一微生物水平的失衡,而会通过代谢-免疫-屏障三大系统的协同失代偿,引发药物动力学(PK)和药效学(PD)的广泛扰动。理清这种多轴联动机制,是实现精准干预的前提。
编辑
doi.org/10.1016/j.arr.2026.103023
代谢轴:药物转化的失控开关
很多口服药的结局,不只由肝肾功能决定——肠道菌群也在参与转化、激活、灭活与清除。
菌群主要从两条路影响用药
1) 直接改造药物分子
部分细菌能还原/脱羧/去甲基等,把药改形态,导致疗效或毒性变化。
2) 间接改造宿主代谢能力
健康菌群产生的短链脂肪酸、胆汁酸等代谢物,可影响肝脏药物代谢酶(如CYP、UGT等)的表达与活性;当菌群紊乱时,这类代谢物谱改变,可能让药物暴露升高或波动更大。
编辑
doi: 10.1080/19490976.2025.2604867
临床例子
注:老年人/多病共存/多药并用时,即使肝肾化验正常,也可能出现半衰期延长、血药浓度异常或ADR风险上升。
当遇到解释不清的疗效波动/不良反应,除了依从性、相互作用、肝肾功能,也可以把菌群状态纳入评估。
免疫轴:慢性低度炎症,正悄悄改写药物反应
老年人常见的菌群失调会提高机体对微生物相关分子(如LPS等PAMPs)的系统性暴露(其中一种来源是肠道通透性改变,下一个轴会详细了解),从而持续激活TLR4/NF-κB等通路,形成炎性衰老背景。
这会怎样影响用药?
1) 改变药代
慢性炎症可下调或扰动肝脏/肠道的药物处置系统(如部分CYP酶、转运体P-gp等),导致同样剂量出现血药浓度更高、波动更大,不良反应风险上升。
2) 改变药效
炎症会重塑靶器官微环境与免疫状态,使药物作用靶点是否可用、反应是否到位发生变化;在免疫相关治疗(如肿瘤免疫治疗、免疫抑制治疗、部分抗炎/免疫调节药)中尤其明显。
临床上你可能看到的矛盾现象
屏障轴:肠道屏障变薄,用药为什么不稳定?
在衰老、慢病与长期用药的叠加下,肠上皮修复能力下降,紧密连接与黏液层保护减弱,“肠漏”更常见——这不只是消化问题,也会直接影响药物反应。
两个核心后果
1) 吸收变得不确定
屏障受损与局部炎症会让肠道的通透性/转运发生改变:有的药吸收偏多,血药浓度升高;有的药吸收不稳,导致同剂量下疗效忽高忽低。
2) 全身稳态被扰动(并放大前两个轴)
屏障一旦松动,细菌成分与代谢产物更容易进入循环,促进低度炎症,进而影响肝药酶/转运体与靶器官微环境,从而形成肠漏 → 炎症 → 用药更波动的恶性循环。
临床上常见的表现
三轴不是并列问题,而是一个协同加剧的闭环
代谢-免疫-屏障三轴协同恶化的最终结果,是老年多病患者体内药物的药代动力学(PK,身体对药物的作用)和药效学(PD,药物对身体的作用)发生不可预测的改变。
PK改变
肠道屏障受损影响药物吸收;菌群代谢和肝脏酶活性改变影响药物的代谢和清除。这导致血药浓度要么过高(增加毒性风险),要么过低(导致治疗失败)。
PD改变
衰老本身就可能改变药物靶点(如受体)的敏感性。菌群失调引发的慢性炎症环境可以进一步改变靶组织的反应性,使得药物效果增强或减弱,或产生非预期的不良反应。
因此,理解这个三轴互作的复杂网络,对于在老年多病患者中实现安全有效的药物治疗至关重要。
老年多病状态下肠道菌群调节药物疗效的核心机制
编辑
doi.org/10.1016/j.arr.2026.103023
在处理患有多种疾病且服用多种不同药物的老年人时,肠道细菌与药物之间的关系变得至关重要。
老年多病患者的菌群失调与药物相互作用
编辑
doi.org/10.1016/j.arr.2026.103023
氯吡格雷 Clopidogrel
氯吡格雷是动脉粥样硬化性心血管疾病(ASCVD)二级预防中最常用的抗血小板药之一。但它有一个关键前提:需要在肝脏经CYP450酶系(尤其CYP2C、CYP3A相关通路)生物活化,才能产生真正抑制血小板的活性代谢物。
在多病共存的老年人群里,我们常看到“同样用药、抑制不够、血栓风险仍高”的情况。越来越多证据提示:肠道菌群失调及其引发的代谢—免疫—屏障轴紊乱,可能系统性地削弱氯吡格雷的有效反应。
下面我们来看这到底是怎么从肠道一路影响到血小板和肝脏的。
先决定药能不能起效——肝脏活化是门槛
氯吡格雷是典型前药(它最怕的是活化环节被压住):
老年人常合并慢性炎症、代谢异常、肝脏基础疾病、肠屏障受损与菌群失调——这些因素并不是彼此独立,而是会相互放大。
再看药效端:TMAO抬高血小板反应性,出现P2Y12旁路
肠道菌群可把膳食中的左旋肉碱、胆碱代谢成TMA,再由肝脏转化为TMAO进入循环。
TMAO升高不仅是风险相关指标,也可能参与机制:它可诱导TLR4介导的信号通路,机制研究提示可能促炎/促血栓,但尚需临床因果验证。
更关键的一点是“旁路效应”:即便P2Y12被抑制,血小板仍可能通过不依赖P2Y12的激活通路被推起来,于是临床上就表现为抗血小板效果不够/耐受倾向。
是谁在调CYP开关:T细胞与炎症信号如何改写药物活化?
CYP不是单纯的代谢酶,它受免疫—炎症信号调控。T细胞参与调控肝脏CYP2C与CYP3A表达,因此不同免疫状态下,氯吡格雷活化可能走向不同方向:
肠屏障受损经肠-肝轴放大炎症,压低CYP活化
多病共存老年人常伴慢性炎症、慢性肝病与心血管疾病,这些因素可破坏肠道紧密连接,增加通透性(也就是肠漏),促使炎症信号升级。系统性炎症常见TNF-α、IL-6升高,而这类促炎因子可能下调肝脏CYP酶,让氯吡格雷更难被充分活化。
菌群失调还可能伴随FXR–FGF15信号下降,扰动胆汁酸代谢,进一步削弱屏障与代谢稳态,让炎症-屏障受损-代谢紊乱更难刹车。
另一个值得关注的线索是黏膜免疫:肠黏膜免疫受损与致病共生菌(如AIEC)定植相关,提示IL-22信号受损;这会加重菌群失调与屏障障碍,经肠-肝轴放大代谢紊乱,并间接压低氯吡格雷的生物活化能力。
小 结
衰老肠道中的菌群失调触发代谢—免疫—屏障恶性循环,削弱氯吡格雷效应。
编辑
doi.org/10.1016/j.arr.2026.103023
三轴相互放大,最终削弱氯吡格雷的抗血小板作用。
地高辛Digoxin
地高辛是经典强心苷类药物,治疗窗很窄:剂量稍低可能无效,稍高就可能出现毒性与心律失常。因此,它对任何能改变肠道吸收、菌群代谢、炎症背景与转运蛋白(P-gp)的因素都格外敏感。
在多病共存的老年人群中,我们更容易看到“同样用药,却出现疗效不足或毒性增高、波动难控”的情况。由于其药代动力学特性较为敏感,容易受到患者肠道细菌影响。
菌群代谢:Eggerthella lenta如何把药变钝?
肠道共生菌 Eggerthella lenta 可通过其相关还原酶系统(如 强心苷还原酶)将地高辛转化为药理活性更弱/无活性的代谢物(二氢地高辛,dihydrodigoxin)。微生物失调导致该菌富集,从而使血清地高辛浓度降低至治疗阈值以下,最终因对心肌的正性肌力作用不足而导致心力衰竭治疗失败。
为什么炎症状态会把“窄治疗窗”变得更危险?
菌群失调不仅影响代谢,还可能通过免疫耐受破坏(如树突状细胞相关的免疫耐受下降)推动系统性炎症。与此同时,肠道屏障受损会促进LPS移位入血,激活TLR4通路,诱导TNF-α、IL-6等促炎因子升高。
对地高辛而言,这种炎症背景的风险在于:地高辛本就与心律失常风险相关,且其毒性更容易在电解质紊乱(如低钾)等情况下被放大。炎症信号进入心脏微环境后,可能增加心肌细胞的电不稳定性,从而提高地高辛相关心律失常的风险。
P-gp 如何决定地高辛的口服吸收上限?
地高辛是经典的 P-glycoprotein(P-gp)底物。P-gp 在肠上皮细胞腔面表达丰富,可把已吸收进入细胞的地高辛外排回肠腔,从而显著限制其通过肠壁进入血液的量,影响口服生物利用度。
动物证据也支持这一点:在保留人源 P-gp、缺失小鼠 P-gp 的模型中,口服后地高辛血浆浓度显著升高,提示P-gp外排是限制暴露的重要因素。因此从理论上说,抑制肠道P-gp活性,可能改善地高辛吸收。
老年多病共存为什么使地高辛疗效更不可预测?
多种因素叠加,使多因素健康问题老年人群中的药物相互作用更具变异性与不可预测性。
小 结
微生物可通过代谢—免疫—屏障三联机制调控地高辛的药代动力学与毒性。肠道菌群失调通过三条轴影响地高辛反应。
编辑
doi.org/10.1016/j.arr.2026.103023
二甲双胍Metformin
二甲双胍(metformin)作为2型糖尿病一线用药,其疗效部分依赖健康的肠道微生态环境;相反,菌群失调可能抑制二甲双胍的治疗效果。
代谢干扰:信号通路抑制与药物代谢加速
菌群失调(特别是拟杆菌属的丰度变化)可通过特定的酶学途径干扰二甲双胍的药代动力学和药效学。
免疫调节失衡:老龄化背景下的炎症干扰
在老龄化人群中,菌群失调与免疫系统的相互作用更为复杂。
屏障功能受损:系统性代谢紊乱的恶性循环
菌群失调导致的紧密连接蛋白降解和肠道通透性增加(即肠漏),不仅影响肠道局部环境,更具有全身性影响。
临床:多病共存老年患者适应不良
在多病共存老年人群中,肠道菌群失调会驱动一种不适应性的循环,形成代谢、炎症与免疫调控异常相互交织的三联网络。
肠道菌群在该循环三条轴中的作用,对于影响二甲双胍疗效至关重要。二甲双胍可作用于肠道微生物群以帮助调节代谢过程、调控免疫反应并维持肠屏障功能;然而,老年人中由衰老与多种慢性病共同导致的重度菌群失调也被证明会对上述结局产生负面影响。
在重度菌群失调状态下,二甲双胍对各轴的有益作用被削弱,最终导致其在多病共存老年患者治疗中的有效性出现极大异质性,甚至可能治疗失败。
小 结
肠道微生物群的代谢-免疫-屏障轴相互作用调控二甲双胍反应的变异性。在老年多病共存中,菌群失调通过相互关联的机制损害二甲双胍疗效。
编辑
doi.org/10.1016/j.arr.2026.103023
免疫检查点抑制剂ICIs
免疫检查点抑制剂(如抗PD-1/PD-L1抗体)的疗效高度依赖于机体的免疫基调(Immune Tone),而肠道菌群是这一基调的关键调节者。菌群失调通过干扰代谢重编程、加剧免疫衰老及破坏屏障功能,削弱T细胞的抗肿瘤应答。
代谢:短链脂肪酸匮乏,阻碍T细胞代谢重编程
在菌群失调期间,代谢轴的异常直接抑制了免疫细胞的抗肿瘤活性。
免疫衰老与分化失衡
老龄化背景下的菌群失调会加速免疫系统的无能化和肿瘤的免疫逃逸。
屏障破坏:系统性炎症干扰
菌群失调导致的物理屏障破坏是系统性干扰的源头。
总而言之,在老年多病患者中,一个失调的肠道菌群会从能量供应、免疫细胞平衡和全身炎症状态等多个维度,全面削弱ICIs的抗肿瘤效果。
小 结
肠道微生物群紊乱会破坏肿瘤微环境中的代谢—免疫—屏障网络,从而降低免疫检查点抑制剂(ICI)的疗效。菌群失调通过三轴失衡削弱ICI效应。
编辑
doi.org/10.1016/j.arr.2026.103023
全球人口老龄化与老年人多种慢性病患病人数增加并存。当前研究持续关注肠道微生物组失调与药物疗效之间的相互作用。
为有效应对这一问题,需要对更广泛且更具效能的治疗策略开展系统性研究与实施设计,并在三个层面的相互作用中统筹考量:代谢、免疫稳态与肠道屏障完整性。采用这一多维模型,可建立全面的调控框架,使研究者能够在系统层面借助网络药理学,精准靶向微生物组与药物治疗之间的相互作用。
益生菌
益生菌是调控肠道微生物组的多种方式之一,也是最常用的干预手段之一;其通常包含多种菌株,不同菌株因独特的代谢特征而产生不同治疗效应。
某些益生菌代谢产生的常见代谢物为短链脂肪酸(SCFAs)。研究表明,SCFAs可与CYP450酶(药物代谢酶家族的重要组成部分)直接相互作用;同时,SCFAs还可通过激活TLR/NF-κB通路增强机体免疫反应,并促进肠上皮细胞中紧密连接相关蛋白的生成。
与代谢类药物联用
多项研究提示,与不同种类的乳酸杆菌属和双歧杆菌属益生菌联用,可显著增强胰岛素、二甲双胍等降糖治疗的获益,其核心可归结为两条菌群介导的代谢调节路径:
不过总体来说仍然缺乏足够的预临床/小规模临床研究,高质量 RCT仍然不足。
-临床证据
胰岛素 + 乳酸杆菌
在1型糖尿病以及未使用其他降糖药的2型糖尿病人群中,联用可降低HbA1c;且这种改善与有益菌群上升(如 Bifidobacterium animalis、Akkermansia muciniphila)相关联。
二甲双胍 + 复合益生菌
例如以 L. rhamnosus Probio-M9、L. casei、L. plantarum P-8、以及 B. animalis subsp. lactis V9/M8(Probio-M8)等组成的组合,在与二甲双胍联用时可提升SCFAs水平,并通过改善胰岛素敏感性增强血糖调控。
抗感染与抗菌生态位竞争
乳杆菌补充剂具有一定的抗微生物效应,可在感染的预防与辅助治疗中发挥作用。其可能机制包括产生多种代谢物并改变局部理化环境,例如:
-代表性联合策略
Lacticaseibacillus paracasei LC11 + 蔓越莓 + D-甘露糖
可降低泌尿道感染复发(特定人群研究)。
乳酸杆菌/双歧杆菌 + 幽门螺杆菌三联疗法
提高根除率、并有望改善疗程耐受性。
肿瘤治疗支持
化疗与放疗常诱发显著的肠道菌群紊乱与黏膜损伤,进而表现为腹泻、黏膜炎、营养不良、炎症升高等一系列问题;在老年肿瘤患者中,这些问题更可能放大为剂量下降、延迟治疗甚至停药。
益生菌在这一场景下的价值更多体现为支持治疗。其有效性可归因于其能够稳定受损的肠道屏障并调节炎症和代谢。
鼠李糖乳杆菌GG+长双歧杆菌+嗜酸乳杆菌+粪肠球菌的组合
该组合已被证明能抵消这些影响。它们通过重建肠道紧密连接和减轻炎症来实现这一目标。
临床证据支持这一屏障恢复的重要性,它已与宫颈癌患者放疗引起的腹泻减少28%相关,从而减少了抗腹泻药洛哌丁胺的使用。
Bifidobacterium BB-536
可通过增加CD8⁺ T细胞向肿瘤浸润,增强抗PD-1免疫检查点抑制剂的疗效。
此外,益生菌通过减少体重增加、低密度脂蛋白(LDL)水平和与多西他赛治疗相关的菌群失调,有助于稳定代谢紊乱。
这些干预措施提高了患者的功能评分并改善了整体生活质量。总之,将益生菌纳入癌症治疗方案中可作为一项重要的支持性措施,有效减少肿瘤治疗相关的附带损伤,并提高患者对治疗方案的耐受性和依从性。
益生菌来源BEVs的跨器官信号:增强抗PD‑1免疫治疗的潜力
发表在《Nature Communications》的一项研究显示,肠道共生益生菌——双歧杆菌(Bifidobacterium)可释放细菌来源的细胞外囊泡(BEVs),这些BEVs能穿越肠屏障被机体吸收,并远程富集于肺癌肿瘤组织。
研究发现,BEVs可被肿瘤细胞摄取,通过TLR4–NF-κB信号上调肿瘤细胞PD-L1,并增强肿瘤微环境中免疫细胞的功能。
编辑
doi.org/10.1038/s41467-025-58553-4
动物实验中,联合给予BEVs和抗PD-1抗体可显著抑制肿瘤生长,较单用抗PD-1效果更佳。
编辑
doi.org/10.1038/s41467-025-58553-4
该机制提示,益生菌可能通过囊泡信号跨器官调节作用,帮助提升免疫治疗(如PD-1抑制剂)疗效。这为老年群体通过益生菌进行辅助抗肿瘤免疫调节提供了全新理论依据。
益生元
益生元(如菊粉与抗性淀粉)可作为有益菌群(如Faecalibacterium、Roseburia)的选择性底物,通过对有益菌的间接作用优化代谢—免疫串扰。
相较活菌制剂,益生元通常具有制剂稳定性更好、质量一致性更高、免疫安全性风险更低等优势,因此在体弱老年人或多病共存人群中,更适合作为低风险的长期辅助干预。
益生元的价值不止于改善菌,还可以作为饮食-微生物-药物三者之间的桥梁。通过改变菌群结构与代谢谱,进而影响宿主对药物的反应与耐受。
茯苓多糖 + 5-FU
动物研究提示其具有一定降毒/增效潜力——例如茯苓多糖可减轻5-FU相关体重下降与肠道损伤,可能与降低促炎因子、增强屏障功能及纠正菌群失调有关。
低聚果糖 + 二甲双胍
在饮食诱导肥胖动物中,低聚果糖与二甲双胍联用较单用进一步改善血糖与体重,并降低内毒素及炎症标志物水平,同时改善菌群。
多酚类既可被菌群转化为生物活性代谢物,也可反向塑造菌群组成,因此非常适合与药物形成代谢协同的联合策略。
多酚类+药物联合治疗非酒精性脂肪性肝病
编辑
doi.org/10.1016/j.jare.2024.03.004
粪菌移植(FMT)
粪菌移植(FMT)是一种独特疗法,通过递送健康供体的功能性菌群联合体来重建肠道微生态平衡。
FMT可调节胆汁酸代谢网络,并恢复产丁酸菌(如Faecalibacterium prausnitzii)的活性,以纠正菌群失调状态。
传统FMT给药方式包括结肠镜或灌肠;而口服胶囊递送与经内镜肠内管递送等新方式显著改善了患者耐受性与依从性。
与药物联用的证据示例
肿瘤免疫治疗(PD‑1/PD‑L1)
FMT可通过免疫重塑提高ICI疗效。
炎症性肠病(克罗恩病)
一项随机试点研究提示,FMT可能提高泼尼松龙治疗患者的临床缓解率,可能与屏障修复与SCFAs恢复相关。
高血压/心血管药物反应
在动物研究中,将“氨氯地平治疗后自发性高血压大鼠”的菌群移植给未治疗大鼠,可降低血压并改善血管舒张、氧化应激与Th17浸润等系统指标;而来自氢氯噻嗪处理动物的FMT未显示类似获益,提示FMT可能转移一种“代谢编程后的微生物表型”,但关键菌种与分子通路仍待明确。
目前FMT临床研究尚未形成标准化给药方案,因此需基于个体患者及其具体健康状态制定标准化剂量策略。迄今FMT研究主要聚焦于单次或短期治疗方案,尤其是在复发性艰难梭菌感染患者中;但对与衰老相关的虚弱等慢性状态的管理,可能需要重复和/或维持剂量方案。当前研究所收集的数据表明,老龄小鼠模型可产生与人类衰老相关的参考数据。
噬菌体疗法
噬菌体治疗是一种新型策略,利用噬菌体(感染细菌的病毒)对抗耐药菌感染,具有改变抗生素耐药性感染治疗范式的潜力。
通过靶向特定微生物,噬菌体可清除耐药病原体及相关菌群(如产生β-葡萄糖醛酸苷酶的E. coli),从而降低因抗生素相关毒素导致的药物再活化和/或代谢紊乱。例如,噬菌体能够从接受伊立替康治疗患者的肠道中清除产生β-葡萄糖醛酸苷酶的E. coli,从而阻止SN-38再活化所致的肠黏膜炎。
此外,这些噬菌体还可通过IL-22依赖的再生促进杯状细胞恢复,为黏膜屏障重建提供机制基础。病原清除与黏膜屏障重建的结合,对治疗多重耐药感染具有重要临床意义,尤其适用于老年人或免疫功能受损人群。
小鼠研究显示,经饮水口服给药(每日4×10⁸ PFU,连续31天)具有安全性证据;但目前尚未报道明确的人体剂量。
通过饮水口服噬菌体以改变肠道微生物组(并具良好安全性)具有前景,但仍需进一步研究以明确长期安全性与有效性,目前也缺乏既定的临床应用时间尺度。
饮食营养干预
营养饮食策略同样是调控肠道微生物群的主要手段之一,且具有多靶点特征。通过改变饮食结构(如增加高纤维食物摄入),可提升肠道微生物多样性并改善其功能,从而构建综合防御体系。
例如,摄入抗性淀粉或富含多酚的食物可改变肠道微生物对营养物质的代谢方式,并特异性触发有利于ICI发挥作用的不同通路。
锌与N-乙酰氨基葡萄糖可通过促进紧密连接相关蛋白(如ZO-2)生成以维持肠细胞间的致密连接,同时促进MUC2产生以利于损伤后修复,从而增强肠道保护层。
对于症状多样、且常合并多重用药的老年患者,单一疗法不足以应对复杂挑战。因此,有必要建立分层、整合的管理策略,以协调上述干预之间的相互作用。
例如,将益生元与工程化噬菌体联用,可在稳定代谢、可控调节细菌群落、以及具有抗炎特点的饮食干预之间形成协同,并与免疫功能与屏障功能改善相结合。
此外,可在全面评估个体肠型、用药史及动态微生物组特征的基础上,为患者制定个体化干预方案。通过组合这些治疗策略,或可提高特定药物或药物组合的治疗效应,降低多药并用导致不良事件的风险,并提升老年人健康管理的整体照护质量。
在老龄化与多病共存叠加的现实中,肠道微生物群已从背景因素走到台前:它通过代谢、免疫与屏障三条主轴,重塑药物疗效与不良反应的边界。现有从益生菌/益生元到FMT、噬菌体与饮食等多种工具,更多是可用的起点。
面向未来,关键在于把经验性调菌推进为可计算、可验证、可迭代的精准体系。
编辑
doi.org/10.1016/j.arr.2026.103023
一方面,以单细胞测序、空间转录组与代谢通量等多组学,在老年多病模型中绘制“宿主—微生物群—药物”互作图谱,解析微生物代谢物对CYP3A4、PD-1、Claudin-18等关键节点的时空调控;
另一方面,建立多中心、纵向随访队列,将标准化菌群检测纳入常规流程(基线分型与重复采样监测),持续记录菌群谱、用药史与结局,捕捉疗效波动及耐受/耐药的演化轨迹。
与之配套的是统一标准的微生物组—药物数据库与临床级算法:让AI/机器学习在临床试验中被严格验证,把高维数据转化为可预测的反应评估和可执行的干预建议。
这些数据的验证将推动针对多病老年人的个性化“菌群-药物”管理策略,提升多重用药安全性并促进健康老龄化。
更进一步,合成生物学有望带来可递送/可响应的智能工程菌、工程化噬菌体—纳米颗粒偶联体,并以连续菌群监测提供反馈,形成“检测—建模—干预—再检测”的闭环,使干预与个体衰老轨迹同频;同时也需以长期人群研究审慎评估气候与生态变化对微生物群及健康老龄化的潜在影响。
当然,前路仍有挑战,个体差异带来的可重复性问题、长期安全性与质控标准、以及高质量随机对照证据的缺口,决定了转化必须稳扎稳打——慢即是快。但方向已清晰:在多病共存与多重用药的时代,微生物群正在成为决定疗效与风险的重要变量。
主要参考文献
Yang D, Ren D, Zhang Y, Hao Y, Yue Y, Li Q, Fan Q, Sun C, Cui M, Zhang M. The gut microbiota dysbiosis in geriatric multimorbidity: Pharmacotherapeutic implications, pathophysiological mechanisms, and precision modulation strategies. Ageing Res Rev. 2026 Jan 13;115:103023.
Preet, R., Islam, M.A., Shim, J. et al. Gut commensal Bifidobacterium-derived extracellular vesicles modulate the therapeutic effects of anti-PD-1 in lung cancer. Nat Commun 16, 3500 (2025).
Li H, Liang J, Han M, Gao Z. Polyphenols synergistic drugs to ameliorate non-alcoholic fatty liver disease via signal pathway and gut microbiota: A review. J Adv Res. 2025 Feb;68:43-62.
Al-Btoosh S, Donnelly RF, Kelly SA. Microbes and medicines: interrelationships between pharmaceuticals and the gut microbiome. Gut Microbes. 2026 Dec 31;18(1):2604867.
de Ciutiis I, Djakovic S, Cagigas ML, Masedunskas A, Smith L, Franceschi C, Fontana L. Long-term fasting and its influence on inflammatory biomarkers: A comprehensive scoping review. Ageing Res Rev. 2025 Aug;110:102797.
Herisson FM, Cluzel GL, Llopis-Grimalt MA, O’Donovan AN, Koc F, Karnik K, Laurie I, Canene-Adams K, Ross RP, Stanton C, Caplice NM. Targeting the Gut-Heart Axis Improves Cardiac Remodeling in a Clinical Scale Model of Cardiometabolic Syndrome. JACC Basic Transl Sci. 2024 Nov 20;10(1):1-15..
谷禾健康
色氨酸是连接“吃什么”“肠道菌群状态”与“大脑和情绪”的关键枢纽。它不仅是蛋白质合成必需氨基酸,也是血清素与褪黑素的重要前体,并可通过犬尿氨酸通路参与NAD+的从头合成。
近年来,大量研究发现:色氨酸在不同代谢通路之间的“分流”,很大程度上受肠道微生物群及饮食结构(如多酚、膳食纤维、碳水化合物和脂肪比例)共同调控。这种调控一旦失衡,不仅会改变肠道屏障和免疫状态,还可通过肠–脑轴深刻影响情绪、认知以及多种神经精神和代谢性疾病的发生发展。
在这一背景下,围绕“肠道微生物–色氨酸代谢–肠脑轴”的研究迅速升温:一方面,人们逐步解析拟杆菌、梭菌、乳杆菌、双歧杆菌等代表菌属如何通过多样的色氨酸代谢途径生成吲哚类、犬尿氨酸类及血清素等关键代谢物;另一方面,肠易激综合征、自闭症谱系障碍、抑郁症、多发性硬化、阿尔茨海默病、帕金森病以及代谢综合征等疾病中,色氨酸代谢及其微生物调控异常的证据也不断被报道。
基于此情况,饮食干预、益生菌、粪菌移植乃至纳米技术等多种策略,正被尝试用于重塑肠道微生态、调整色氨酸代谢稳态,以期为肠脑轴相关疾病提供新的防治思路。
本文将系统梳理色氨酸的膳食来源和主要代谢通路,重点介绍肠道微生物中特定菌属参与色氨酸代谢的机制,阐述其在肠脑轴中的作用及与多类神经、免疫和代谢性疾病的关联,并总结目前通过饮食、益生菌、抗生素及新兴技术调控色氨酸稳态的研究进展和潜在应用价值。
▸ 色氨酸的重要性
编辑
色氨酸(Trp)是一种人体无法合成、需从饮食获取的必需氨基酸,也是血清素、褪黑素和NAD+等多种人体重要化合物的前体。
血清素:一种神经递质,在情绪调节和肠道蠕动中发挥作用;
褪黑素:一种调节睡眠-觉醒周期的激素;
NAD+:是500多种酶促反应所必需的,并且在几乎所有主要生物过程的调节中起着关键作用。
总得来说,可以概括为五个关键词:
•情绪与睡眠:是血清素和褪黑素的唯一氨基酸前体,直接影响情绪稳定、抗压能力、睡眠节律和食欲控制。
•免疫与神经保护:通过犬尿氨酸通路调节免疫反应与神经系统状态,在炎症和精神疾病中扮演关键角色。
•能量与修复:可转化为烟酸,支持 NAD⁺ 合成,保障细胞能量代谢、抗氧化、防老化和 DNA 修复。
•生长与组织结构:参与全身蛋白质合成,对儿童生长发育、肌肉维持和器官功能至关重要。
•肠道与肠—脑轴:影响肠道屏障功能和菌群代谢,通过肠—脑轴联系情绪、免疫和代谢健康。
▸ 色氨酸的主要膳食来源
①肉类
禽肉:鸡肉、鸭肉、火鸡肉(尤其是去皮鸡胸肉);
猪肉、牛肉、羊肉:瘦肉部分色氨酸含量相对更高。
②鱼类和其他水产
深海鱼:三文鱼(金枪鱼、鲭鱼等)、鳕鱼;
其他常见鱼类:草鱼、鲤鱼、罗非鱼等;
甲壳类:虾、蟹;
软体类:鱿鱼、贝类等。
③蛋类和乳制品
鸡蛋:尤其是蛋白和蛋黄整体算上;
奶及奶制品:牛奶、酸奶、奶酪(尤其是硬质奶酪,蛋白浓缩后单位重量色氨酸含量更高)。
④豆类及豆制品
豆类:黄豆、黑豆、毛豆、扁豆、豌豆、鹰嘴豆、红豆、芸豆等;
豆制品:豆腐、豆干、豆皮、素鸡、豆浆(色氨酸有一定稀释,但作为日常饮品仍有贡献)。
⑤坚果与种子
南瓜籽、葵花籽;
芝麻(黑白芝麻);
花生;
腰果、杏仁、核桃、开心果等坚果。
⑥谷物与伪谷物
全谷物:燕麦、糙米、荞麦、全麦面包/面条;
其他:藜麦(伪谷物,氨基酸组成较优)、玉米、小米等。
⑦水果(含量较低)
香蕉、牛油果(鳄梨)、榴莲;
一些干果:葡萄干、枣干等(因为脱水后营养被“浓缩”);
大多数鲜果(苹果、梨、橙子、葡萄、西瓜、草莓等)蛋白含量本身就低,色氨酸自然也少,更多作用是提供维生素、矿物质和膳食纤维。
注:咖啡豆中也含有较高含量的色氨酸。
▸ 色氨酸推荐摄入量
世界卫生组织建议最佳摄入量为4毫克/千克/天,主要用于成年人维持日常需求。
★ 不同年龄和阶段的人需求有所不同
婴儿需要更高的色氨酸摄入量,推荐剂量为13毫克/千克/天;
儿童推荐摄入量为6毫克/千克/天;
孕妇为7毫克/千克/天。
为保证获得足够氨基酸及其健康效应,研究还评估了色氨酸的可耐受最高摄入量(UL),结果为4.5g/天。不过迄今尚无因膳食色氨酸过量而致不良反应的报道。
注:高碳饮食会影响脑干和下丘脑的5-羟色胺(5-HT,也称为血清素)。膳食纤维通过调节肠道菌群也改变色氨酸代谢。微量营养素亦调控色氨酸/犬尿氨酸(KYN)通路,如维生素B6缺乏损害犬尿氨酸酶并可能降低某些脑区5‑HT合成。
食物中约90%的色氨酸由小肠吸收,吸收后,主要经犬尿氨酸(KYN)途径和血清素途径代谢。
体内约95%的色氨酸(Trp)在Trp 2,3‑二加氧酶(TDO)、吲哚胺 2,3‑二加氧酶1(IDO1)和吲哚胺 2,3-双加氧酶2(IDO2)作用下分解为喹啉酸(QA)、烟酸等产物;仅约 1%–2% 的色氨酸在色氨酸羟化酶(TpH)和芳香族氨基酸脱羧酶催化下转化为5‑羟色胺(5‑HT)。
通过5-HT、KYN和吲哚途径进行的色氨酸代谢
doi.org/10.1016/j.jfutfo.2024.09.006.
★ 肠道菌群参与重要的色氨酸代谢
若进入结肠,肠道微生物群也可以通过各种代谢途径产生多种色氨酸代谢产物。
注:早在1897年,即发现大肠杆菌和霍乱弧菌可将色氨酸转化为吲哚,提示色氨酸代谢在微生物过程及其对宿主环境影响中的重要性。
微生物群可以通过在宿主体内产生代谢物直接调节色氨酸代谢,或通过参与犬尿氨酸和血清素的产生间接影响这种代谢,而色氨酸代谢的变化会影响微生物的增殖和微生物群落的多样性。目前已鉴定出许多微生物色氨酸代谢途径,包括拟杆菌属、梭菌属、双歧杆菌、链球菌属和大肠杆菌的代谢途径。
虽然某些细菌色氨酸代谢产物的转化可以在分子层面上易于定义,但识别产生的具体代谢物类型却十分复杂。这种复杂性源于不同微生物催化酶的差异。在某些情况下,两个或多个细菌之间的协作可能是色氨酸代谢物生成的必要条件。
拟杆菌属(Bacteroides)
吲哚是通过色氨酸酶(Trpase)的酶促活性产生的,这种酶广泛存在于多种肠道细菌中,包括拟杆菌属、梭菌属和大肠杆菌。
√卵型拟杆菌、多形拟杆菌等可代谢产生吲哚乙酸
拟杆菌是人体和动物肠道中的一种主要菌群,一些拟杆菌属物种,如脆弱拟杆菌(Bacteroides fragilis)、卵形拟杆菌(Bacteroides ovatus)和多形拟杆菌(Bacteroides thetaiotaomicron),可以产生吲哚乳酸(ILA)和吲哚乙酸(IAA)。
√不同拟杆菌代谢色氨酸的产物影响不同(有的减轻肠道炎症、有的影响精神状态)
研究发现,肠道中不同拟杆菌的相关代谢物的影响不同。例如B.thetaiotaomicron可提高芳烃受体(AHR)配体吲哚乙酸(IAA)和吲哚丙酸(IPA)水平,增强 AHR 激活及相关T细胞转录因子表达。在结肠炎模型中,该菌通过激活AHR并调控CD4⁺T 细胞分化,减轻炎症性肠病。
微生物色氨酸分解物对宿主生理的作用
编辑
doi: 10.1038/s41467-018-05470-4.
通过分析无菌和单菌定植小鼠盲肠及粪便样本证实,B.ovatus可提高体内IAA浓度,重塑免疫细胞群,减轻炎症,并在三硝基苯磺酸诱导性结肠炎模型中上调结肠 IL‑22 表达;吲哚代谢物本身也能刺激免疫细胞分泌 IL‑22。研究人员认为,B.ovatus 产生的 IAA 通过促进 IL‑22 生成而对结肠炎具有保护作用。
还有研究表明,B.thetaiotaomicron和B.fragilis可诱发小鼠压力相关的抑郁样行为(如焦虑和绝望),而B.ovatus无此效应。
√同属不同菌种产生的代谢物可能差异显著
亲缘关系密切的属的不同菌株之间也存在显著的代谢差异,这很可能是由于微生物的遗传代谢和化学环境存在差异。使用四种不同的拟杆菌属菌株重建的小鼠回肠中色氨酸/犬尿喹啉酸(KYNA)途径的多种变化,支持了代谢调控的这种变异性。拟杆菌属还可能诱导中枢5-羟色胺代谢紊乱,使小鼠对应激诱导的行为障碍敏感。
√膳食缺乏色氨酸还会降低拟杆菌丰度
膳食中摄入的色氨酸也会显著影响拟杆菌属的生长状态和数量变化。研究表明,当饮食中实施严格的 色氨酸限制时,不仅会明显降低粪便中拟杆菌的丰度,还会同步重塑和改变整个肠道微生物群的组成与结构。
梭菌属(Clostridium)
梭菌属中的某些物种在吲哚衍生物的合成中发挥着重要作用。Clostridium drakei是一种能够产生乙酸的细菌,与C.scatologenes类似,可通过色氨酸的分解代谢转化3-甲基吲哚。3-甲基吲哚是一种常见的肠道代谢产物,又称粪臭素,被认为会导致猪肉产生异味。它可由脆弱拟杆菌(B.fragilis)和梭菌属(Clostridium)产生。
√丁酸梭菌抗肥胖作用还源于色氨酸代谢调节信号通路
丁酸梭菌(Clostridium butyricum)可以在肠道中产生丁酸盐,具有缓解多种疾病的潜力,包括炎症性肠病和肥胖症。
几种丁酸梭菌菌株具有抗肥胖作用,但这些作用并非完全通过提高肠道中丁酸盐的浓度来实现,还主要通过改变肠道微生物群和色氨酸(Trp)代谢来实现。丁酸梭菌可能通过产生吲哚和吲哚衍生物来激活芳香烃受体(AHR)信号通路,并调节宿主的代谢和免疫系统,从而改善肥胖。
√梭菌可能富含多种色氨酸代谢途径
最近的体外实验发现,B.thetaiotaomicron通过向大肠杆菌提供单糖,抑制其产生吲哚的能力,从而增加了对生孢梭菌(Clostridium sporogenes)的色氨酸供应,进而促进了吲哚乳酸和吲哚丙酸的产生。通过在小鼠饮食中补充富含色氨酸的食物,并增加梭菌属、乳杆菌属和双歧杆菌属的数量,重塑了小鼠肠道微生物的结构和组成,从而改善了类似抑郁的行为。
据报道,梭菌属(Clostridium)可通过色氨酸(Trp)的代谢产生吲哚、吲哚衍生物和色胺。研究发现,该属的菌株具有产生喹啉酸(QA)的潜力,且预测Clostridium hathewayi具有QA途径。然而,该菌株中缺失了负责合成QA途径前体犬尿氨酸(KYN)的基因,这表明QA途径具有代谢共享性,且包括梭菌属在内的部分生物以KYN为底物,而KYN是由包括芽孢杆菌属(Bacillus)、伯克霍尔德氏菌属(Burkholderia)和假单胞菌属(Pseudomonas)在内的另一组细菌产生的。
肠道微生物群通过肠脑轴影响色氨酸代谢
编辑
doi.org/10.1016/j.jfutfo.2024.09.006.
总体来看,梭状芽孢杆菌富含多种色氨酸代谢途径,相关分析表明其在肠道中具有更强的色氨酸代谢潜力。
乳杆菌属(Lactobacillus)
乳杆菌是正常肠道微生物群的重要成员,主要包括植物乳杆菌(Lactiplantibacillus plantarum)、干酪乳杆菌(Lactobacillus casei)、嗜酸乳杆菌(Lactobacillus acidophilus)、鼠李糖乳杆菌(Lactobacillus rhamnosus)、罗伊氏乳杆菌(Lactobacillus reuteri)、清酒乳杆菌(Lactobacillus sakei)和弯曲乳杆菌(Lactobacillus curvatus)。
√乳杆菌通过上调吲哚乙酸水平可以缓解结肠炎
乳杆菌可通过芳香族氨基酸氨基转移酶和吲哚乳酸脱氢酶(ILDH)将色氨酸转化为吲哚-3-醛(IAld)和吲哚乳酸(ILA)。研究人员筛选出色氨酸代谢活性最高的 L. plantarum,并联合 Trp 观察其在 DSS 诱导溃疡性结肠炎中的作用。
结果显示,该菌上调了吲哚乙酸(IAA)水平及 AHR mRNA 表达,进而激活 IL-22/STAT3 信号通路。通过比较不同 L. plantarum 菌株的基因组和代谢组,认为 IAA 可能是导致菌株间结肠炎缓解效果差异的关键代谢物。
√鼠李糖乳杆菌通过代谢色氨酸增强肠道屏障
筛选出可在肠道定植并在体外代谢色氨酸生成吲哚衍生物的L. rhamnosus MN-431。该菌同时上调孕烷 X 受体(PXR)和芳烃受体(AHR)的表达:大量 ILA 和 IAld 作为 AHR 配体,而共享配体 IA 主要结合 PXR,通过上调 PXR、AHR 并下调核因子 κB(NF-κB),增强肠道屏障功能。
尽管其具体吲哚代谢产物及体内代谢情况尚未完全明确,但多项证据提示L.rhamnosus对肠道益生健康具有潜在益处。
√罗伊氏乳杆菌产生的吲哚-3-醛有助于抑制结直肠癌
研究表明,吲哚-3-醛(I3A)是罗伊氏乳杆菌来源的膳食色氨酸(Trp)分解代谢产物,可诱导芳香烃受体依赖的环磷酸腺苷反应元件结合蛋白(CREB)活性,从而增强 Tc1 细胞(分泌干扰素-γ(IFN-γ)的 CD8⁺ T 细胞)的效应功能,并提高免疫检查点抑制剂的抗肿瘤效果。
当 I3A 自小肠转移至肿瘤微环境后,罗伊氏乳杆菌可激活肿瘤中的 I3A–AHR–CD8⁺ T 细胞轴,促进分泌 IFN-γ 的细胞毒性 CD8⁺ T 细胞活化。有研究发现,他汀类药物也可降低结直肠癌(CRC)风险,且该作用依赖肠道微生物群。分析显示,给药后肠上皮细胞 IDO1 基因表达受抑制,肠道色氨酸水平升高,罗伊氏乳杆菌丰度显著增加,更多 Trp 被其代谢为吲哚-3-乳酸(ILA),且二者呈正相关。ILA 通过调节 TH17 反应和维持屏障完整性抑制 结直肠癌,其中视黄酸受体相关孤儿核受体 γt 和 AHR 共同参与。
双歧杆菌属(Bifidobacterium)
双歧杆菌是经顺产和母乳喂养婴儿肠道微生物群的关键成员。母乳中色氨酸(Trp)含量高于大多数婴儿配方奶粉,且富含益生元,有助于双歧杆菌等有益菌在婴儿肠道定殖。
双歧杆菌是新生儿最早定殖的微生物之一,在其生理发育中发挥重要作用。一项研究显示,约90%新生儿在出生后肠道中检出双歧杆菌,该属在成人肠道菌群中仍占约 3%–5%。常见种类包括长双歧杆菌、短双歧杆菌、青春双歧杆菌和假长双歧杆菌等。
√双歧杆菌产生吲哚乳酸有助于抑制条件致病菌
检测从人类和动物胃肠道分离的双歧杆菌,发现吲哚乳酸(ILA)是其培养上清液中的色氨酸代谢物。来自婴儿粪便的长双歧杆菌和短双歧杆菌产生的 ILA 多于其他来源分离的菌株,因此婴儿肠道中双歧杆菌定殖所形成的 ILA 可能为其在结肠菌群中提供竞争优势。ILA 具有抗菌活性,可抑制大肠杆菌在肠道中的定植。
其他肠道微生物群
√大肠杆菌、霍乱弧菌
研究发现,大肠杆菌和霍乱弧菌(V. cholerae)可将色氨酸转化为吲哚。大肠杆菌具有活跃的色氨酸和吲哚转运蛋白,色氨酸酶可将色氨酸转化为吲哚,在大肠杆菌和乳酸菌中均有表达。然而,负责吲哚后续代谢的具体微生物酶途径,以及吲哚在其他共生菌中的分布和活性仍不明确。
√肠球菌、假单胞菌
多项研究表明,部分细菌可产生色胺(tryptamine)等神经活性分子,或通过影响肠嗜铬细胞/炎症状态间接调控宿主5-HT合成。
肠道微生物将 Trp 作为吲哚、血清素和褪黑素合成前体加以代谢,从而减少宿主可利用的 Trp。假单胞菌可利用现有色氨酸合成血清素,并通过其毒性及细胞间信号传导,使肠道菌群诱导循环 Trp 水平下降,进而影响 5-羟色胺能神经传递,以及中枢神经系统和肠神经系统(ENS)的功能。
√消化链球菌
消化链球菌(Peptostreptococcus)能够代谢色氨酸(Trp),从而产生吲哚-3-丙烯酸(IA,indole-3-acrylicacid)等吲哚类代谢物。IA对肠上皮屏障的功能有积极作用,并有助于减少免疫细胞中的炎症反应。Peptostreptococcus russellii具有苯丙氨酸脱水酶基因簇(fldAIBC),该基因簇与生孢梭菌(C. sporogenes)中的fldAIBC基因簇同源,且对苯丙氨酸的代谢至关重要。
同样,厌氧消化链球菌编码完整的fldAIBC基因簇,并产生色氨酸代谢产物吲哚丙酸(IPA)和异亮氨酸(IA),而口腔消化链球菌则缺乏初始因子fldI,导致色氨酸代谢产物水平较低。
小结
围绕特定肠道菌属或菌种的色氨酸代谢开展研究,有望为微生物群靶向调控色氨酸代谢提供新思路,例如通过基因序列同源性筛选具色氨酸代谢能力的菌株。
此类研究有助于构建基于肠道微生物群的精准干预策略,以改善 Trp 代谢失衡相关疾病。聚焦特定菌种或菌株与色氨酸的相互作用,科学家可开发更精细的调控手段,优化这一关键代谢通路,从而促进整体健康并应对多种代谢性疾病。
肠道微生物群通过产生激素、免疫因子和代谢物,在大脑行为和认知发育中发挥重要作用。出生后,肠道细菌的早期定殖可促进中枢神经系统发育。肠道微生物群影响中枢神经系统的结构和功能,并可调节情绪。
★ 肠道微生物群通过产生激素、信号分子等影响神经系统功能
动物研究表明,微生物群失衡常导致焦虑样行为;相反,特定益生菌干预或重建微生物群则有助于改善焦虑相关行为:缺乏正常肠道微生物群会严重干扰中枢神经传递,而肠道微生物群恢复后,小鼠的焦虑行为可恢复正常。
肠道微生物群可通过产生神经信号分子或调节内分泌细胞激素影响中枢神经系统功能。研究证实,口服婴儿双歧杆菌后,大鼠脑内 5-HTP、5-HIAA 和苯乙酸水平显著高于对照组。肠道微生物群还能通过影响内分泌细胞皮质酮水平调节 HPA 轴反应强度,在应激反应中发挥关键作用,并调控促肾上腺皮质激素释放因子和脑肠肽等激素的分泌。
注:脑肠肽是一类同时存在于大脑和肠道的活性肽类物质,通过脑-肠轴双向调节消化、代谢、情绪等生理功能,是神经、内分泌、免疫系统的重要信号分子。
编辑
★ 色氨酸代谢是肠脑轴中的重要组成部分
肠脑轴(GBA)描述了大脑与肠道之间的双向交叉。GBA拥有复杂的沟通系统,包括中枢神经系统(CNS)、肠神经系统(ENS)和胃肠道(GI)之间的双向相互作用。
脑肠相互作用主要有三个机制:神经通路、内分泌通路和免疫通路,微生物积极参与GBA内的代谢途径,影响微生物-肠-脑轴(MGBA)相关代谢产物。这些包括微生物产生的神经递质、短链脂肪酸,以及色氨酸等的直接或间接代谢。这些过程调节下丘脑-垂体-肾上腺(HPA)轴和细胞因子的产生,以调节免疫力。
色氨酸代谢及其相关代谢物对肠脑轴至关重要。微生物肠脑轴直接影响情绪和心理状态,还与免疫系统密切相关,并且与胃肠道慢性疾病相关。
▸ 血清素通路与肠脑轴
色氨酸(Trp)及其代谢物的三条关键代谢途径在大脑与肠道间的沟通中发挥重要作用。约 90% 的体内血清素由肠嗜铬细胞(EC)合成:Trp 先经色氨酸羟化酶1(TPH1)转化为5-羟色氨酸(5-HTP),随后进一步生成血清素(5-HT)。血清素作为核心胃肠信号分子,在肠道内外神经元之间传递信息,调节肠道蠕动与运动、上皮分泌、血管扩张及营养吸收,从而影响整体消化功能。
√色氨酸代谢调节血清素水平进而影响多种组织
在中枢神经系统与胃肠道的双向通讯中,血清素在中枢和外周均作为神经递质发挥作用。外周血清素不能通过血脑屏障,而色氨酸可跨越血脑屏障并在中枢合成血清素。因此,色氨酸代谢的改变会影响外周色氨酸的利用和中枢色氨酸水平,从而调节中枢血清素代谢。
经肠脑轴介导的胃肠神经调控可通过改变血清素信号传递,影响中枢神经系统的神经传递。早期神经元具有类似内分泌器官的功能,可从大脑释放多种生物活性物质(如血清素),既参与脑发育调控,又调节内脏靶器官(如胃肠道)及全身多种组织的发育。
例如,血清素(5-HT)通过其受体参与心血管调节,这些受体在调控心血管反射以及交感、副交感神经活动中具有重要生理作用。血清素受体分布于多种心血管组织及参与心血管调节的中枢区域,其激活可对心血管功能产生多方面影响。中枢血清素缺乏会导致 5-HT 能通路异常、血清素能支配减弱,并因血清素下降而诱导海马脑源性神经营养因子表达升高,引起过度神经支配。血清素水平改变也被认为与自闭症、精神分裂症等神经精神疾病的发生密切相关。
√血清素是肠神经系统的关键信号分子
肠神经系统(ENS)由胃肠道壁内的神经成分构成,是一个独立而复杂的神经网络,可在相对独立于中枢神经系统的情况下调节肠功能。
但 ENS 又通过交感和副交感神经与中枢神经纤维相连,对肠蠕动和局部血流等基本胃肠功能至关重要。5-HT 能神经元是 ENS 中最早出现的神经元之一,而 5-HT 是 ENS 的关键信号分子。
5-HT 受体的激活与成人期神经发生和神经保护相关;成人 ENS 的正常发育依赖5-HT受体4特异性信号,神经元来源的 5-HT 与黏膜来源的 5-HT 通过互补作用共同促进肠神经系统成熟。
▸ 犬尿氨酸路径与肠脑轴
将色氨酸代谢为犬尿氨酸(KYN)的关键酶包括色氨酸 2,3‑二加氧酶(TDO)、吲哚胺 2,3‑二加氧酶1(IDO1)和吲哚胺 2,3-双加氧酶2(IDO2)。其中,TDO以肝脏表达为主;肠道黏膜及免疫相关组织中IDO1更为关键。
√犬尿氨酸代谢影响中枢神经系统,并与神经疾病相关
约95%的色氨酸经犬尿氨酸通路(KP)代谢为烟酰胺和NAD+。TDO 负责启动 KP,是该通路的主要限速酶;肝外 KP 分支则由两种 IDO 酶调控,IDO 主要在黏膜组织(如免疫系统和肠道)中活跃。KYN 通常先被羟基化为 3-HK,再转化为 3-HAA;HAA 通过非酶促中间反应迅速生成喹啉酸(QA),并进一步转化为 NAD+,为 KP 的主要终产物。另一支 KP 则在 KAT 作用下生成犬尿氨酸(KYN),参与神经调节。
KYN 及其代谢物可影响中枢神经系统,并与多种神经系统疾病相关。约 60% 的外周 KYN 可通过血脑屏障进入中枢,在星形胶质细胞中转化为犬尿喹啉酸(KYNA),其水平与神经保护相关;而喹啉酸(QA)由小胶质细胞产生,其升高与神经元兴奋性毒性有关。KYNA 与 QA 之间的失衡被认为与抑郁症、精神分裂症和多发性硬化等神经系统疾病的发生密切相关。
注:在肠神经系统(ENS)和中枢神经系统(CNS) 中,犬尿喹啉酸(KYNA)作为 N-甲基-D-天冬氨酸受体和 α7 烟碱型受体的拮抗剂,同时又是G蛋白偶联受体 GPR35 的激动剂。
▸ 色氨酸代谢物与肠脑轴
肠道微生物群可直接利用色氨酸(Trp),将约 4%–6% 转化为吲哚、色胺及吲哚酸衍生物。
肠道菌群将色氨酸转化为色胺和吲哚-3-丙酮酸(IPYA),后者进一步生成吲哚、吲哚-3-乙醛(IAAld)和吲哚乳酸(ILA)。IAAld 可转化为吲哚乙酸(IAA)和色氨酸,IAA 还可继续代谢为粪臭素;ILA 则可转化为 IA,随后生成 IPA。
√色氨酸经肠道微生物代谢产生的吲哚和色胺影响神经系统
吲哚是调节肠道的重要信号分子。吲哚及其衍生物(如 IAA)可作为 AHR 配体,通过激活小胶质细胞和星形胶质细胞介导中枢神经系统炎症。AHR 配体可能通过干扰素α受体1相关通路,发挥抗炎和神经保护作用,从而调控中枢神经系统炎症。
吲哚作为 AHR 配体,还能通过影响电压门控钾通道和线粒体 NADH 脱氢酶,调节小鼠结肠 L 细胞中胰高血糖素样肽-1(GLP-1)的分泌。研究证实,肠源性吲哚代谢物可能作用于扩展奖赏网络,尤其是杏仁核–伏隔核以及杏仁核–前岛叶皮层通路。
微生物代谢产物扩散穿过肠道屏障后,可经迷走神经将信号由胃肠道传递至中枢神经系统。在大鼠中鞘内常规注射吲哚会升高脑内吲哚和色胺水平,激活迷走神经,降低运动活动,并诱导 c-Fos 过度表达。c-Fos 是迷走神经激活的重要标志,提示吲哚可激活肠黏膜中的迷走神经传入纤维。
色氨酸(Trp)作为必需氨基酸,不仅是蛋白质合成的基本原料,也是连接肠道微生物群与中枢神经系统的重要代谢枢纽。色氨酸代谢一旦在通路比例或关键代谢物水平上发生失衡,既可影响情绪与认知等神经精神功能,又与抑郁症、精神分裂症、多发性硬化等中枢神经系统疾病,以及多种慢性胃肠道疾病的发生和进展密切相关,因此成为近年来肠脑轴相关疾病研究与干预的核心焦点之一。
肠脑轴相关疾病及治疗策略
编辑
doi.org/10.1016/j.jfutfo.2024.09.006.
▸ 肠易激综合征(IBS)
肠易激综合征(IBS)是一种常见的肠道功能紊乱性疾病,可表现为腹痛、腹泻以及伴发的焦虑和抑郁。
√肠脑轴失衡是IBS的重要特征
肠脑轴(GBA)失衡是 IBS 发病机制的突出特征之一,而肠道微生物群及其代谢产物在其中起关键调控作用。多项针对 IBS 患者粪便样本的研究发现,在门水平上,Bacillota和Bacteroidota比例升高,而双歧杆菌(Bifidobacterium)和乳杆菌(Lactobacillus)比例降低;链球菌(Streptococcus)和瘤胃球菌(Ruminococcus)数量亦有所增加。
肠道微生物群结构和组成的改变与多种胃肠道疾病相关,包括 IBS。据估计,约10%的IBS发生于胃肠炎之后,此类患者的微生物特征与腹泻型 IBS(IBS-D)及单纯腹泻患者高度相似。胃肠蠕动异常是 IBS 的重要表现之一,而肠道微生物群及其代谢物可通过影响肠道神经元、胶质细胞和肠壁肌层巨噬细胞等多种途径调节胃肠动力。
√肠易激综合征患者存在血清素合成及功能受损
目前关于 IBS 机制的研究部分聚焦于色氨酸向血清素(5-HT)的转化通路,该通路同时调节胃肠功能和情绪。据报道,IBS 患者结肠和直肠中色氨酸羟化酶1(TPH1)表达降低,导致 5-HT 合成及其功能受损。
还观察到 IBS 患者的犬尿氨酸(KYN)水平升高,IDO 活性显著增强,并且与症状严重程度呈正相关;与此同时,KYN 代谢产物犬尿喹啉酸(KYNA)水平下降,KYNA/KYN 比值降低,提示 KYNA 与 IBS 发病呈负相关。KYNA 对中枢神经系统和肠道具有抗炎、镇痛及情绪保护作用,因此其代谢失衡可能构成 GBA 功能紊乱的重要基础。
▸ 自闭症谱系障碍(ASD)
自闭症谱系障碍(ASD)是一种复杂的神经发育障碍,主要影响沟通、社交能力和行为。许多儿童和成人 ASD 患者伴有明显的胃肠道症状,如便秘和腹泻,且这些症状与 ASD 的严重程度相关。
√自闭症患者肠道多样性降低
研究表明,这些胃肠道表现与肠道微生物群及其代谢物失衡有关,可影响胃肠功能和神经生物学状态。ASD 及其他神经发育障碍患者的粪便微生物群α多样性降低,且与健康对照组相比,自闭症谱系障碍患者的Bacillota与Bacteroidota比值升高。
√某些微生物可能通过影响色氨酸可用性参与自闭症的发病机制
几项评估自闭症患者肠道微生物丰度差异的研究将自闭症症状与Prevotella、Coprococcus、Veillonellaceae丰度较低联系起来。
脆弱拟杆菌(一种胰蛋白酶合成细菌),可能会降低自闭症患者的色氨酸可用性。非色氨酸衍生的微生物代谢产物也可能起到因果作用,一项观察自闭症小鼠母体免疫激活(MIA)模型中肠道微生物代谢产物的研究显示,微生物代谢产物4-乙基苯基硫酸盐增加了46倍,如果小鼠被脆弱拟杆菌定殖,则其正常化。
√自闭症患者存在色氨酸代谢异常
多项研究提示ASD患者存在色氨酸(Trp)代谢异常:血浆Trp水平降低,KYN/Trp比值升高,说明 Trp 代谢由血清素合成通路偏向犬尿氨酸通路(KP)。
研究还发现,ASD 患者细胞利用 Trp 作为能量底物的能力低于对照组,提示 Trp 代谢减弱可能通过影响大脑早期发育、线粒体稳态及脑内免疫代谢通路而发挥作用。进一步证明,ASD 儿童与对照儿童在尿代谢物上的主要差异集中于色氨酸和嘌呤代谢通路,ASD 儿童更倾向于将 Trp 代谢为黄尿酸和犬尿喹啉酸,同时减少 KYNA 生成。对这些代谢异常的深入认识有望促进 ASD 的早期和更可靠的诊断。
▸ 抑郁症
抑郁症是一种常见的精神障碍,也是当代社会致残的主要原因之一。患者常表现为情绪低落、绝望、快感缺失、疲乏及睡眠障碍。
√肠道微生物群可能通过多条通路影响抑郁
有研究发现,抑郁症患者的肠道微生物群组成和结构与健康人明显不同,提示“肠–脑”调控具有双向性。肠道微生物群可能通过影响多条在抑郁中被扰乱的通路(包括色氨酸代谢和免疫系统)参与其发病。血清素可用性下降是抑郁症的重要特征,而其他色氨酸代谢产物(如犬尿氨酸)同样与抑郁密切相关,这些代谢改变很可能由肠道微生物群驱动。
√色氨酸及血清素水平紊乱影响抑郁症状
作为关键神经递质,血清素(5-HT)参与调控中枢神经系统的应激与适应反应,其紊乱与抑郁发作密切相关。突触间隙 5-HT 含量下降可诱发抑郁,且抑郁患者突触后膜中 5-HT 受体密度与敏感性均降低。降低吲哚胺 2,3‑二加氧酶(IDO)表达、提高脑内5-HT水平被认为是潜在治疗靶点。
血浆色氨酸降低及犬尿喹啉酸(KYNA)/色氨酸(Trp)比值升高与抑郁相关;同时,抑郁患者血浆 KYNA/喹啉酸(QA)比值下降:KYNA 通过激活 GPR35 调节 cAMP 生成,并抑制交感神经元和星形胶质细胞的Ca2+通道,降低炎症转录因子 NF-κB 表达,抑制炎症相关通路,具有神经保护和抗炎作用;相反,喹啉酸(QA)具神经毒性,参与抑郁发生。肠上皮 GPR35 还能通过微生物群调控 IAld 与 ILA 等代谢产物的平衡;GPR35 缺失可诱导类抑郁行为,而在此背景下补充吲哚-3-醛(IAld)具有潜在抗抑郁效应。
√肠道微生物群通过调节色氨酸代谢影响抑郁
色氨酸代谢的紊乱是抑郁症病理的重要因素,肠道微生物群在影响这一代谢过程中起着关键作用。研究发现褪黑素以微生物群依赖性的方式改善色氨酸代谢,缓解卵巢切除小鼠的抑郁样行为。
细菌通过多种机制在抑郁症中发挥作用,益生菌与其他细菌的结合可以通过多种机制缓解抑郁症。探索多种益生菌疗法、益生元和共生菌对于进一步了解它们恢复色氨酸代谢和缓解抑郁行为的潜力至关重要。
▸ 多发性硬化症
多发性硬化症(MS)是一种常见的中枢神经系统自身免疫性疾病,也是青年人致残的主要原因之一。研究发现,MS 患者的色氨酸(Trp)水平显著低于健康对照,且 Trp 代谢关键产物犬尿喹啉酸(KYNA)与喹啉酸(QA)的平衡变化会通过调节犬尿氨酸通路(KP)影响疾病进程,从而有望缓解 MS 症状。
√丁酸梭菌调节色氨代谢减轻多发性硬化症
实验性自身免疫性脑脊髓炎(EAE)是研究 MS 的经典动物模型。研究显示,该模型中肠道微生物群可产生犬尿喹啉酸(KYNA),进而招募并激活 GPR35 阳性巨噬细胞,促进 EAE 发展。特别值得注意的是,在无菌小鼠中,只有能够产生 KYNA 的大肠杆菌菌株才能恢复 EAE 表型,而野生型大肠杆菌不足以诱导相同效应,突出了 KYNA 在该过程中的特异作用。
鉴于肠道微生物群在其中发挥关键调控作用,通过益生菌(如丁酸梭菌)调节色氨酸代谢通路,有望减轻神经退行性疾病。肠源性色氨酸代谢物还能作为 AHR 配体调控星形胶质细胞,从而影响中枢神经系统炎症。
▸ 神经退行性疾病
神经退行性疾病包括阿尔茨海默病(AD)和帕金森病(PD)等,其中 PD 的特征为多巴胺能神经元逐渐丧失。研究表明,与对照相比,PD 患者血浆和血清色氨酸浓度明显降低,血清色氨酸的下降可能与其常见的心理症状相关。AD 患者外周血中色氨酸降解增加,同样导致血清色氨酸水平下降。
√调节色氨酸代谢影响中枢神经从而减轻帕金森病
在帕金森病(PD)中,3-羟基犬尿氨酸(3‑HK)水平升高,可能通过诱导氧化应激损伤神经元;而 KYNA 水平降低,外源性 KYNA 注射可减轻 PD 症状。
进一步研究发现,通过调节 TDO 活性和色氨酸代谢,可影响中枢神经系统内外多种KYN通路神经活性代谢物的水平;抑制 TDO 既能增强神经保护、减少蛋白毒性、预防记忆减退,又有助于缓解胃肠功能障碍,有望成为帕金森病治疗的新靶点。
√色氨酸代谢产物调控阿尔茨海默病的Aβ沉积
阿尔茨海默病(AD)的主要病理特征为神经原纤维缠结和β淀粉样蛋白(Aβ)沉积。小胶质细胞和星形胶质细胞在 AD 的进展中起关键作用,色氨酸及其代谢物可调控这两类细胞的活化,从而改善认知功能并抑制 Aβ 沉积。
阿尔茨海默病患者体内3-羟基犬尿氨酸(3‑HK)和喹啉酸(QA)水平均升高,其中 QA 在多种神经系统疾病中已被证实具有神经毒性。相比之下,犬尿喹啉酸(KYNA)具有神经保护作用;部分研究发现,KYNA 和5-羟基哚烯乙酸(5-HIAA)能诱导蛋白酶 Neprilysin 的表达,进一步支持色氨酸代谢产物在脑内调控 Aβ 水平的作用。
注:Neprilysin(脑啡肽酶,NEP)是一种锌依赖性金属蛋白酶,在人体内具有多种重要的生理功能,主要涉及肽类物质的降解。
▸ 代谢综合征
代谢综合征(MetS)包括腹型肥胖、高血压、血脂异常和胰岛素抵抗等心血管危险因素。
√代谢综合征患者的色氨酸代谢紊乱
在肥胖和 MetS 人群中,犬尿氨酸(KYN)、犬尿喹啉酸(KYNA)和喹啉酸(QA)水平升高,犬尿氨酸/色氨酸比值上升,且尿酸、甘油三酯与色氨酸(Trp)向 KYN 的转化率呈正相关。受炎症状态调节的吲哚胺2,3-二氧化酶1(IDO1)将色氨酸代谢为犬尿氨酸。犬尿氨酸途径的抑制剂可能用于治疗代谢综合征。
外周血清素(5‑HT)水平升高及色氨酸羟化酶1(TPH1)多态性与肥胖相关。研究表明,缺失 TPH1 的小鼠在高脂饮食下可避免肥胖、胰岛素抵抗和非酒精性脂肪肝,提示外周 5‑HT 抑制能量消耗,而肥胖可反过来提高外周 5‑HT 水平。不过,也有研究发现 5‑HT 与肥胖呈负相关,说明其调控机制复杂且尚未完全阐明。此外,降低 5‑HT 活性的 TPH2 变异会增加抑郁症患者发生MetS的风险。
√色氨酸转化产物吲哚衍生物调控代谢
微生物群通过色氨酸转化产生的几种吲哚衍生物可能在代谢综合征的发病机制中起作用。
吲哚本身已被证明可以刺激肠内分泌 L 细胞产生胰高血糖素样肽-1 (GLP-1),这是一种刺激胰腺 β 细胞分泌胰岛素的肠降血糖素。这种机制涉及快速抑制刺激 GLP-1 分泌的电压门控 K+ 通道,但受 ATP 合成抑制的长期影响控制,减少GLP-1分泌。
除神经系统异常外,肠脑轴(GBA)相关疾病患者还常伴有便秘、腹泻等胃肠道症状,其中肠道微生物群失调及其代谢物改变是重要原因。
因此,越来越多研究尝试通过靶向肠道微生物群治疗此类疾病。愈来愈多证据将胃肠功能障碍与肠脑轴相关疾病联系起来,肠道极可能成为这类患者的潜在治疗靶点。
饮食
饮食被认为是影响微生物色氨酸代谢的重要因素。
√多酚、膳食纤维调节肠道菌群及色氨酸代谢
最新研究发现,小米中的多酚化合物奎宁酸通过改善肠道微生物群的组成并增加微生物代谢物吲哚乙酸和犬尿氨酸发挥抗炎作用,为预防阿尔茨海默病(AD)提供了潜在靶点。
膳食纤维可以减少吲哚的产生,同时促进其他有益健康的色氨酸代谢产物的生成。
√富含麦麸的饮食调节色氨酸代谢物的合成和转化
富含麦麸的饮食有效地抑制了色氨酸向犬尿氨酸途径代谢物的转化,同时增加了褪黑激素和微生物分解代谢物,即吲哚-3-丙酸、吲哚-3-乙醛和 5-羟基-吲哚-3-乙酸。
麦麸增加了促进健康的细菌(例如,Akkermansia和Lactobacillus),它们与色氨酸衍生的吲哚类代谢物显著相关。
富含麦麸的饮食还可有效调节与免疫功能相关的微生物转化和色氨酸合成(即增加 AhR 和 IL-22 的结肠表达),同时改善葡萄糖和脂质稳态,以及增加肠道健康促进菌的丰度。
√碳水化合物:影响色氨酸代谢速率
微生物色氨酸代谢速率可能受肠腔内营养物质(如碳水化合物)可利用性变化的影响。
体外研究显示,从仔猪粪便中分离的一株利用色氨酸的细菌,在可消化碳水化合物(葡萄糖)存在时,主要将色氨酸用于细菌蛋白质合成;而在不可消化碳水化合物(低聚果糖)存在时,则以其为底物产生吲哚。
进一步研究表明,通过添加低聚果糖、抗性淀粉等不可消化碳水化合物,可提高碳水化合物可利用性,促进其代谢并增加短链脂肪酸生成,同时减少色氨酸降解及吲哚类化合物的产生。
这些结果说明,提高碳水化合物可利用性可抑制肠道微生物对色氨酸的降解,进而影响循环色氨酸库。相反,碳水化合物供应增加还能促进肠道血清素(5‑HT)合成,并与胃肠道运动增强相关——这一点已在口服多糖的小鼠实验中得到证实。微生物产生的短链脂肪酸增加也可能参与其中。
√高脂肪饮食:抑制色氨酸向吲哚代谢物的转化
研究表明,高脂饮食会耗尽小鼠盲肠中的微生物代谢产物吲哚乙酸和色胺,提示在高脂状态下微生物色氨酸降解途径减弱。
同时,高脂饮食显著提高小鼠肠道 IDO 活性,促进色氨酸向犬尿氨酸的分解代谢。肠道微环境在高脂暴露下发生改变,抑制了微生物将色氨酸转化为吲哚类代谢物,尤其是吲哚‑3‑丙酸、吲哚‑3‑乳酸和吲哚乙酸盐。这些代谢物是 AhR 激动剂,在免疫调节中具有关键作用。
益生菌
益生菌,如属于乳杆菌属和双歧杆菌属的细菌,对色氨酸代谢产生有益影响。
√益生菌促进血清素合成
一方面,益生菌,如乳杆菌和双歧杆菌中的物种,可以直接将色氨酸转化为血清素。
另一方面,一些益生菌乳杆菌菌株,如干酪乳杆菌,可以通过增加TPH1表达间接促进结肠血清素合成。
√益生菌与犬尿氨酸途径的调节密切相关
与血清素水平升高相一致,大鼠口服约氏乳杆菌(Lactobacillus johnsonii)无细胞上清液后,血清犬尿氨酸水平及肠道 IDO 活性均下降。连续口服约氏乳杆菌 8 周的人体试验亦观察到血清犬尿氨酸降低,且色氨酸含量呈上升趋势。
此前研究还发现,大鼠补充益生菌婴儿双歧杆菌(Bifidobacterium infantis)可升高色氨酸水平,并降低血循环中犬尿氨酸/色氨酸比值。
上述结果提示,部分乳杆菌和双歧杆菌益生菌可能通过抑制犬尿氨酸途径来调节宿主色氨酸代谢。
慎用抗生素
√抗生素会调节肠道微生物群对色氨酸的代谢
已有研究报道,抗生素所致的微生物变化会影响犬尿氨酸通路:微生物群耗竭可提高小鼠和猪体循环中色氨酸的可用性,并减弱其沿犬尿氨酸通路的代谢。同时,一些研究也发现,抗生素诱导的菌群改变影响猪体内微生物色氨酸降解途径的激活。随着循环色氨酸升高,口服抗生素减少了空肠中色氨酸的可用性,并降低猪大肠中微生物色氨酸脱羧活性,却增加了大肠中吲哚及其衍生物含量。
有趣的是,最新研究发现,将主要作用于大肠菌群的广谱抗生素输注至回肠末端,反而使血循环中色氨酸水平下降,并增强微生物对色氨酸的降解,从而提高大肠吲哚水平。与既往结果相对,这提示肠道微生物群在应对不同抗生素干预时,对色氨酸代谢具有复杂而独特的调节作用。
其他方法
√粪菌移植通过影响肠道菌群调节色氨酸代谢
粪便微生物群移植(FMT)也被证明对受体结肠内菌群的色氨酸代谢具有调节作用,通过设计合成菌群,可以改善肠道微生物群的功能障碍,包括色氨酸代谢。
√纳米技术、增加多糖利用位点
一些能够代谢色氨酸的稀有细菌,如B.thetaiotaomicron,可以通过多个多糖利用位点来增加其丰度。纳米技术是一种在微观层面操纵肠道微生物群相互作用的新方法。该技术在诊断和治疗肠脑轴(GBA)相关疾病方面不断取得进展
还有研究人员设计了一种口服活生物治疗剂,利用乳酸乳球菌(Lactococcus lactis),该治疗剂能增强小肠靶向性并促进外源性乳酸乳球菌的产生,从而实现大脑功能的精确调控。
下表总结了相关疾病患者中益生菌、抗生素及饮食干预等的临床试验,显示这些干预可更有效缓解神经系统疾病相关的胃肠症状。
编辑
编辑
doi.org/10.1016/j.jfutfo.2024.09.006.
注:然而,目前尚无确切证据证明这些干预能缓解神经系统问题,难以直接肯定或否定其疗效,因为它们可能对由不同因素导致的神经系统疾病产生不同影响。
肠道微生物群、肠脑轴与色氨酸代谢共同构成了贯穿局部肠道环境与全身神经功能的核心网络。不同菌群通过竞争性利用色氨酸、分泌多种吲哚及其衍生物、调节血清素及犬尿氨酸等关键代谢通路,不仅重塑肠黏膜屏障和局部免疫微环境,也通过迷走神经、循环代谢物和炎症信号将“肠道事件”转译为情绪、认知及行为的改变。可以说,肠道微生物群对色氨酸代谢“走向”的精细调控,是肠脑轴发挥双向调节功能的重要生物学基础。
在此背景下,许多神经精神及肠道相关疾病可被重新理解为“微生物群–色氨酸代谢–肠脑轴”失衡的不同表现:一端是菌群多样性下降、关键代谢菌减少或致病菌增殖,另一端则是色氨酸流向偏移、保护性代谢物不足或神经毒性代谢物累积。
饮食模式变化、抗生素使用、感染、压力等多种因素,都可能通过扰动肠道微生态和色氨酸代谢,推动疾病的发生与进展。这一视角为从源头干预肠道微生物群、重构肠脑轴稳态提供了理论支撑。
未来,围绕这三者间的关系仍有大量问题有待解答。需要进一步解析不同菌群在色氨酸代谢网络中的分工与协同,明确哪些代谢通路、哪些受体信号是真正决定肠脑轴“方向”的关键节点;需要通过严谨设计的临床试验评估饮食干预、益生菌制剂、粪菌移植及新型靶向技术在神经精神结局上的真实获益与适用人群;更需要在此基础上构建以肠道菌群特征和色氨酸代谢谱为核心的分层管理与预测体系,推动从“经验调节微生态”走向“精准重塑肠脑轴”。
随着基础研究与转化医学的不断推进,以肠道微生物群‑肠脑轴‑色氨酸代谢为靶点,有望成为未来干预多类神经及代谢相关疾病的关键突破口。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Yuxuan Xia, Chuan Zhang, Leilei Yu, Qingsong Zhang, Arjan Narbad, Wei Chen, Qixiao Zhai, Fengwei Tian,Tryptophan metabolism and the gut-brain axis: focus on specific gut microbial genera,Journal of Future Foods,Volume 6, Issue 5,2026,Pages 740-752,ISSN 2772-5669,https://doi.org/10.1016/j.jfutfo.2024.09.006.
Seo SK, Kwon B. Immune regulation through tryptophan metabolism. Exp Mol Med. 2023 Jul;55(7):1371-1379.
Roager HM, Licht TR. Microbial tryptophan catabolites in health and disease. Nat Commun. 2018 Aug 17;9(1):3294.
Agus A, Planchais J, Sokol H. Gut Microbiota Regulation of Tryptophan Metabolism in Health and Disease. Cell Host Microbe. 2018 Jun 13;23(6):716-724.
Kundi ZM, Lee JC, Pihlajamäki J, Chan CB, Leung KS, So SSY, Nordlund E, Kolehmainen M, El-Nezami H. Dietary Fiber from Oat and Rye Brans Ameliorate Western Diet-Induced Body Weight Gain and Hepatic Inflammation by the Modulation of Short-Chain Fatty Acids, Bile Acids, and Tryptophan Metabolism. Mol Nutr Food Res. 2021 Jan;65(1):e1900580.
Mörkl S, Butler MI, Holl A, Cryan JF, Dinan TG. Probiotics and the Microbiota-Gut-Brain Axis: Focus on Psychiatry. Curr Nutr Rep. 2020 Sep;9(3):171-182. doi: 10.1007/s13668-020-00313-5. Erratum in: Curr Nutr Rep. 2020 Sep;9(3):183.
Yano JM, Yu K, Donaldson GP, Shastri GG, Ann P, Ma L, Nagler CR, Ismagilov RF, Mazmanian SK, Hsiao EY. Indigenous bacteria from the gut microbiota regulate host serotonin biosynthesis. Cell. 2015 Apr 9;161(2):264-76.
Zhang Y, Fan Q, Hou Y, Zhang X, Yin Z, Cai X, Wei W, Wang J, He D, Wang G, Yuan Y, Hao H, Zheng X. Bacteroides species differentially modulate depression-like behavior via gut-brain metabolic signaling. Brain Behav Immun. 2022 May;102:11-22.
谷禾健康
Akkermansia muciniphila(AKK菌)因其独特的黏蛋白降解能力和与宿主健康的复杂关系,目前已成为微生物学和医学研究的前沿热点。谷禾此前已对该菌进行过系统性介绍。
肠道重要菌属——Akkermansia Muciniphila,它如何保护肠道健康
本文将继续深入探讨AKK菌的研究前沿。
2004年,当这株微小的厌氧菌首次从人类粪便中被分离出来时,没人预料到它会凭借独特的黏蛋白降解能力(当然目前又陆续发现了几个黏蛋白降解菌),在此后近二十年间掀起一波又一波的研究热潮。
更引人关注的是AKK菌呈现出耐人寻味的双面性:它既是下一代益生菌的希望之星,与代谢健康、长寿紧密相连;又在某些特定情境下显现出促进疾病的潜在风险。这种复杂的功能属性,正是当前科研亟待厘清的关键议题。
三篇发表于顶级期刊的AKK菌研究为该领域带来了重要突破:
这三篇文献从不同维度构建了迄今为止最为全面和深入的AKK菌研究图景,涵盖了其基本生物学特性、复杂的基因组结构与菌株多样性、与宿主免疫系统的精密互作机制,以及在不同疾病模型中呈现的矛盾表型,系统解析了这些现象背后的科学逻辑。
因此,本文谷禾整合了这三篇文献的核心观点,以科研从业者的视角带领大家深入解构AKK菌的研究进展。我们希望与各位共同探讨一个关键问题:如何理性认知并合理应用AKK菌这个双面细菌,从而真正实现精准调控肠道健康的目标。
嗜黏蛋白阿克曼氏菌(Akkermansia muciniphila),简称为AKK菌,属于疣微菌门。这个名字是为了纪念荷兰微生物生态学家Antoon Akkermans博士,而“muciniphila”则源自拉丁语,意为偏爱黏蛋白。
注:Antoon Akkermans:荷兰瓦赫宁根大学(Wageningen University)微生物生态学家,对土壤和肠道微生物研究有重要贡献。
AKK菌的发现和命名具有里程碑意义
2004年,仅使用黏蛋白(mucin)作为唯一的碳源和氮源进行富集培养了该菌。AKK菌具备独特的酶系统,能够降解并利用黏蛋白作为其生存和生长的主要能量来源,这种自给自足的能力使其在竞争激烈的肠道环境中占据了稳定的一席之地。
其模式菌株为Akkermansia muciniphila MucT(亦写作Muc5),拥有多个菌株编号,如ATCC BAA-835、DSM 22959等,是目前研究中应用最广泛的菌株。
生态位
AKK菌在人体肠道中占据着一个非凡的生态位——肠道黏液层。这一层由宿主杯状细胞分泌的黏蛋白糖蛋白构成,是隔开肠道上皮细胞与肠腔内大量微生物的第一道物理和化学屏障。
从分布来看,AKK菌不仅存在于人类肠道,也广泛栖息于包括小鼠、牛、猪、兔等多种脊椎动物的胃肠道。
形态与基本特性
在显微镜下,AKK菌呈现为一种椭圆形、不运动、不产芽孢的革兰氏阴性严格厌氧菌。
AKK菌并非绝对厌氧
研究发现,在只有微量氧气的环境中,它不仅能存活,甚至可能生长得更好。这主要得益于其基因组编码的细胞色素 bd 氧化酶复合物等耐氧机制。
也正因为具备这种有限耐氧能力,AKK菌才能适应并定植于结肠黏液层——这里处在厌氧的肠腔与相对更富氧的上皮细胞之间,存在明显的氧梯度。
结构特征,驱动互作
AKK菌约2.66Mb的基因组,是其特殊生活方式的说明书。其中最引人注目的,就是黏蛋白利用基因簇(Mucin Utilization Loci, MULs)。
黏蛋白转运系统:把食物带回家再吃的策略
Grant等人的研究指出,这些基因编码了一套精密的黏蛋白转运系统,能将黏蛋白大分子吞入菌体内部一个叫黏蛋白体的特殊结构中进行降解。这种偏自私的代谢策略,有点像把食物带回家再吃,从而最大限度地减少了与肠道中其他微生物的营养竞争,进而巩固自身的生存优势。
编辑
此外,它的细胞表面也布满了武器。电镜观察到的菌毛样结构,特别是重要的外膜蛋白Amuc_1100,不仅参与黏附,更是与宿主免疫系统直接对话的关键分子。
其细胞壁的肽聚糖层含有非乙酰化的葡糖胺残基,这在革兰氏阴性菌中相当罕见,使其能被宿主的NOD1和NOD2受体识别,从而触发免疫应答。这些独特的结构,都为它与宿主之间复杂的相互作用埋下了伏笔。
生态分布:影响因素和趋势
AKK菌在人群中的分布呈现出鲜明的特征
根据人类肠道微生物组图谱对来自20个国家3268名健康人的数据分析,AKK菌在约40.3%的健康供体中被检测到,平均相对丰度为1.24%。这个数字看似不高,但其分布的倾向性却极具信息量。
AKK菌的分布图谱
编辑
Grant et al., Nature Microbiology
a) 在健康人群中,其丰度和患病率存在地理和性别差异。
b) 在不同疾病状态下,其丰度呈现显著变化,例如在IBD中减少,而在帕金森病中富集。
c) 其相对丰度随生命周期动态变化,在百岁老人中再次出现高峰。
d) 进化树揭示了AKK菌属内部复杂的系统发育关系。
从图1中我们可以清晰地看到:
-地域与生活方式
工业化人群中的丰度更高,这暗示着饮食或生活方式可能是其丰度的重要调节因素。
-年龄
AKK菌在婴儿期迅速定植,成年后逐渐下降,但在百岁老人中却意外地再次富集,被认为是健康长寿的潜在标志物。Luo等人的文章也系统总结了这一现象,指出AKK菌在人类中的年龄依赖性定植模式与在小鼠中的模式恰好相反,这提醒我们在选择动物模型时需格外谨慎。
-疾病状态
这是最能体现其双面性的一点。在炎症性肠病(IBD)患者中,AKK菌丰度显著降低(UC患者中为9.9%,克罗恩病患者中为14.3%);然而,在帕金森病(90.3%)、某些癌症(如黑色素瘤,65.9%)和动脉粥样硬化(83.3%)患者中,其丰度却异常增高。这种看似矛盾的分布模式,强烈暗示AKK菌的角色并非简单的好或坏,而是深度依赖于宿主的病理生理背景。
Tips:看到这些分布数据,首先想到的不是简单的因果关系,而是一个复杂的生态反馈回路。例如,在IBD中,AKK菌的减少可能是肠道炎症环境恶化、黏液层破坏的结果,而非原因。反之,在帕金森病中,其增多也可能是一种代偿性反应,或是神经退行性疾病引发的肠道环境改变所致。将AKK菌丰度作为疾病的生物标志物时,我们必须高度审慎,通过系统证据加以判别:该因素究竟是事件升级的关键驱动(促进因素),是对事态的响应性干预(缓解因素),还是与结果无显著因果关联的伴随出现(旁观变量)。
所以构建真实世界的特定疾病样本人群数据才能更有助于解析复杂的肠道微生态,类似的菌还有如活泼瘤胃球菌和普雷沃氏菌等相互矛盾的研究。
三篇文献都不约而同地强调了菌株水平多样性的重要性。
长久以来,大多数研究都围绕着模式菌株MucT(ATCC BAA-835)展开。然而,随着基因组学技术的发展,AKK菌家族的内部复杂性逐渐浮出水面。基于全基因组测序,研究人员已将AKK菌划分为至少四个系统发育群(phylogroups, AmI-AmIV)。
这些不同发育群的菌株虽然16S rRNA基因序列高度相似(>;99%),但其全基因组的平均核苷酸同一性(ANI)却可能低于95%,这已经达到了物种划分的界限。这意味着,我们过去所称的“A. muciniphila”很可能是一个包含多个物种或亚种的复合体。这种基因组上的差异,直接导致了功能上的多样性:
代谢能力差异
Loannou等人提到,AmII发育群的菌株拥有合成维生素B12的能力,而AmI发育群则不具备,这直接影响了它们的代谢产物谱。不同菌株对人类母乳寡糖(HMOs)的利用效率也存在显著差异。
对宿主影响的差异
在DSS诱导的结肠炎小鼠模型中,研究人员发现不同的人源AKK菌株对肠道炎症的影响截然不同:一个菌株表现出保护作用,两个菌株没有效果,而第四个菌株甚至有加剧炎症的趋势。这为我们敲响了警钟:随意使用一种AKK菌株来治疗IBD,可能不仅无效,甚至有害。
抗生素抗性差异
模式菌株MucT携带多种抗生素抗性基因(如blaA, dfrA, sul, tetM, van)。但从健康人中分离的菌株,其抗性谱各不相同。考虑到AKK菌具有通过水平基因转移获取新基因的能力,将一个未经充分安全性评估的活菌株作为益生菌推向市场,存在传播抗生素抗性的潜在风险。
对于产业界而言,开发AKK菌产品时,可能要对菌株进行全面的功能和安全性评估(包括代谢能力、免疫调节特性、抗生素抗性谱、基因转移能力等)是不可或缺的关键步骤。
AKK菌能在竞争激烈的肠道环境中占据一席之地,并与宿主展开如此复杂的对话,其背后是一套精妙的分子机制。这不仅是它生存的智慧,也是我们理解其双面性的钥匙。
黏蛋白降解
AKK菌对黏蛋白的降解,远非简单的啃食。它拥有一整套工具箱——即种类繁多的碳水化合物活性酶(CAZymes)。这个过程极具策略性:
-外层突破
首先,通过表面的唾液酸酶和岩藻糖苷酶,切除黏蛋白聚糖链最外层的唾液酸和岩藻糖残基。
-核心瓦解
接着,动用半乳糖苷酶、己糖胺酶和硫酸酯酶等,逐步分解聚糖核心结构。
-内部消化
降解产物通过糖转运系统高效内化。AKK菌虽不具备拟杆菌式的典型PULs/MULs基因簇,但其膜转运蛋白能有效摄取降解后的单糖和寡糖,进行发酵,最终产生乙酸、丙酸等短链脂肪酸(SCFAs)。
注:
编辑
其中,丙酸的产生尤为重要。它不仅是其他肠道菌的能量来源,还能通过激活G蛋白偶联受体GPR41和GPR43,刺激肠道L细胞分泌胰高血糖素样肽-1(GLP-1),从而参与调节宿主的血糖稳态和食欲。这部分解释了AKK菌在代谢性疾病中的有益作用。
与免疫系统的多渠道对话
AKK菌与宿主免疫系统的互作,是一场多层次、多渠道的复杂对话。Grant等人的文章中这个信息量大的图,为我们生动地展示了这一过程。
AKK菌与宿主结肠黏膜的相互作用机制示意图
编辑
Grant et al., Nature Microbiology
有几个关键的互作途径:
编辑
图源:doi.org/10.1038/s41579-024-01106-1
AKK菌并非孤立地存在于肠道中,而是作为复杂微生物网络的一部分,与其他细菌、古菌甚至病毒发生着密切的相互作用。这些相互作用包括协同合作、竞争排斥和营养交换(交叉喂养),共同决定了肠道微生态的结构、功能以及对宿主健康的影响。
交叉喂养:生态系统中的资源分享者
尽管AKK菌被描述为自私的黏蛋白降解者,因为它倾向于将黏蛋白内化代谢,但这一过程实际上为其他微生物创造了丰富的资源。
为产丁酸菌提供底物
AKK菌降解黏蛋白释放的单糖(如岩藻糖)和产生的代谢产物(如乙酸盐、丙酸盐),可以被许多重要的产丁酸菌利用。
例如,在共培养实验中,AKK菌能支持产丁酸菌如Anaerostipes caccae、Anaerobutyricum hallii、Faecalibacterium prausnitzii、Roseburia等细菌的生长,并促进有益代谢物丁酸盐的产生。丁酸盐是结肠上皮细胞的主要能源,具有强大的抗炎和维持肠道屏障完整性的功能。
编辑
图源:doi.org/10.1038/s41579-024-01106-1
双向营养交换
AKK菌与其他细菌的相互作用可以是双向的。例如,它与A. hallii之间存在互惠共生关系:AKK菌为A. hallii提供黏蛋白降解产物和乙酸用于丁酸合成,而A. hallii产生的丁酸等代谢物有助于维持适宜AKK菌生长的肠道微环境。
某些研究还提示可能存在更直接的代谢物交换,如维生素或辅因子的共享,但具体机制仍在探索中。
协同作用:共同抵御疾病
A. muciniphila 可能需要其他微生物的存在来预防某些疾病。
1+1>2:微生物协同互作的抗病潜力
例如,在结直肠癌(CRC)小鼠模型 Apc 突变小鼠中,单独定植 A. muciniphila 或幽门螺杆菌导致肿瘤负担增加,而两者共定植则减少了肠道肿瘤数量。
A. muciniphila Muc 和狄氏副拟杆菌(Parabacteroides distasonis)表现出协同的抗结肠炎关系。
在癫痫 Kcna1⁻/⁻ 小鼠中,A. muciniphila Muc和 狄氏副拟杆菌的联合给药通过降低细菌交叉代谢产生的γ-谷氨酰转肽酶活性,在控制饮食条件下预防了癫痫发作。
这些发现强调了一个核心观点:微生物之间的相互作用网络,比单一菌株的存在与否更能决定疾病的结局。
编辑
图源:doi.org/10.1038/s41579-024-01106-1
不单单是AKK菌,而应评估菌群的整体效应
这种复杂的互作关系提示我们在应用层面需要更宏观的视野。
通过菌株脱除试验发现, A. muciniphila 的引入,与抗炎共生菌普拉梭菌(F. prausnitzii)丰度降低相关(在疾病诱导之前),对柠檬酸杆菌(C. rodentium)感染的易感性部分归因于这种细菌网络的变化。这意味着,即使 AKK 菌无法长期定植,它作为过客仍可能重塑肠道菌群的功能结构。
因此,未来评估益生菌应用时,不能仅盯着 AKK 菌本身,而应将其视为生态系统的一个扰动因子,充分重视个体间菌群基线的差异,深入评估其对肠道微生态结构和功能的长期重塑作用,以及宿主原有菌群对其行为的反向调控。
竞争与拮抗
在肠道有限的生态位中,竞争是不可避免的。
与黏液降解菌的竞争
在以MUC2为唯一碳源的体外共培养体系中,当AKK菌与其他的黏液降解菌如普通拟杆菌(Bacteroides vulgatus)、活泼瘤胃球菌(Ruminococcus gnavus)等一起培养时,AKK菌的生长会受到抑制,而其他细菌的生长则被促进。这表明在黏液降解这一功能上存在激烈的竞争。
对其他菌群的负向影响
在某些情况下,AKK菌的存在可能对其他有益菌产生负面影响。
例如,在一个定义的微生物群落中,AKK菌的存在与抗炎共生菌Faecalibacterium prausnitzii丰度的降低相关。但这种相关性并不一定代表因果关系——可能是:环境条件改变导致两者同时变化,或其他因素的间接影响特定疾病状态的反映(如炎症性肠病)。
与普雷沃氏菌的负相关
在人类肠型(enterotype)研究中,AKK菌通常在以Ruminococcus属为主的肠型中富集,而与以普雷沃氏菌为主的肠型呈负相关,这反映的是菌群组成的自然差异,不同肠型由遗传、饮食、地理位置等多因素决定,不是AKK菌排斥普雷沃氏菌,而是不同的生态位和代谢特征。
目前最核心、也最令人困惑的部分:AKK菌在不同疾病背景下的双面角色。三篇文献都花费了大量篇幅,尽力为我们揭示了这种环境依赖性。
AKK菌与结肠炎:保护、致病与宿主互作的复杂博弈
关于AKK菌与结肠炎的关系,研究结论充满了矛盾。
保护作用
在常规的DSS化学诱导结肠炎模型中,灌胃AKK菌或其蛋白Amuc_1100,通常能观察到保护效果。其机制包括上调紧密连接蛋白(如ZO-1、Occludin)以修复屏障、减轻内质网应激、促进Treg细胞应答等。Luo等人的综述也证实,活菌能够增加紧密连接蛋白的表达。
致病作用
然而,一旦宿主背景改变,情况就可能逆转。在遗传易感的Il10-/-小鼠(一种自发性结肠炎模型)中,单独定植AKK菌反而会加剧炎症,导致黏液层变薄和促炎细胞因子上调。这表明,在宿主免疫调节能力受损(如缺乏关键的抗炎因子IL-10)的情况下,AKK菌的黏蛋白降解活性可能弊大于利。
宿主蛋白的策反
Grant等人的研究揭示了一个更为精妙的机制。在溃疡性结肠炎患者中,一种名为Intelectin-1(ITLN1)的宿主蛋白会过度表达。这种蛋白会特异性地结合AKK菌,将其拉到更靠近上皮细胞的位置。这种亲密接触在炎症背景下,反而加剧了免疫反应和组织损伤。
感染:启动防御,还是放大风险?
在面对外来病原体入侵时,AKK菌的角色同样摇摆不定。
有益面:抗感染
AKK菌的某些组分或代谢物显示出抗感染的潜力。例如,其产生的三肽RKH能通过阻断TLR4信号通路,保护小鼠免于致死性脓毒症。Amuc_1100蛋白则能预防沙门氏菌引起的肝损伤。
有害面:缺膳食纤维就吃粘液层,病原体侵入
AKK菌的关键功能——降解黏蛋白,在特定条件下会为病原体开门。
在一项设计精巧的无菌小鼠实验中,研究者发现,缺乏膳食纤维的饮食会导致肠道中的AKK菌饥不择食,转而大量消耗黏液层。这层被削弱的物理屏障,使得致病菌Citrobacter rodentium能够轻易入侵,导致致命感染。
更具说服力的是,当研究者从这个菌群中移除AKK菌后,即使在无纤维饮食下,小鼠也能免于感染。这证明了AKK菌在这种情境下的内鬼角色。有趣的是,一旦恢复富含纤维的饮食,AKK菌的存在反而与较低的病原体载量相关,显示出保护作用。
编辑
Tips:同一种菌,两副面孔:有膳食纤维时,AKK菌是肠道卫士;没有纤维时,它却会啃食肠道黏膜。这个营养开关,让它在天使与魔鬼之间切换。这个发现具有极其重要的实践意义。告诉我们,补充AKK菌益生菌的同时,如果忽略了饮食管理(特别是保证充足的膳食纤维摄入),可能不仅无法获益,甚至可能损害肠道屏障,增加感染风险。这为精准营养与精准菌群干预的结合提供了强有力的理论依据。
癌症:抗肿瘤反应与促肿瘤微环境的动态博弈
在癌症领域,尤其是结直肠癌,AKK菌的形象同样复杂。
促癌风险
部分研究在结直肠癌患者的肿瘤组织和相应的小鼠模型中,都观察到了AKK菌的富集。有观点认为,它通过降解黏液屏障,可能为肿瘤的发生发展创造了条件。
抑癌潜力
然而,另一些研究则得出了相反的结论。AKK菌的EVs、乙酰转移酶Amuc_2172等组分,在小鼠模型中显示出抑制肿瘤生长的效果。
在免疫治疗中的助攻
AKK菌在癌症研究中最高光的时刻,莫过于其在免疫检查点抑制剂(如PD-1抗体)治疗中的作用。
多项研究一致发现,对PD-1治疗有反应的癌症患者(包括肺癌、肾癌等),其肠道中AKK菌的基线水平显著更高。更关键的是,在小鼠模型中,将无反应者粪菌移植给小鼠后,再补充AKK菌,能够重新恢复小鼠对PD-1治疗的敏感性。这表明AKK菌可能通过调节全身免疫状态,增强了抗肿瘤免疫应答,从而成为免疫治疗的增效剂。
代谢与神经系统疾病:更偏向有益的角色
相较于在炎症和感染中的摇摆不定,AKK菌在代谢性疾病中的有益作用,是目前证据最为一致、也最具转化潜力的领域。无论是动物模型还是初步的人体研究,补充活菌或巴氏杀菌的AKK菌,都被证明能够改善胰岛素敏感性、降低胆固醇、减少脂肪堆积。其机制与促进GLP-1分泌、调节脂肪酸代谢、减轻低度炎症等密切相关。
在神经系统疾病中,AKK菌的关联性再次变得复杂。它在帕金森病和多发性硬化症患者中常常富集,体外实验也显示它可能诱导α-突触核蛋白聚集或促炎反应。然而,也有研究将多发性硬化症患者中AKK菌的增多与较低的残疾程度联系起来,提示这可能是一种有益的代偿反应。这种矛盾性再次凸显了菌株差异和宿主背景的重要性。
面对AKK菌如此复杂,我们该如何从科学研究走向临床应用?有幸的是三篇文献为我们提供了一些思考和前瞻性的指导。
编辑
Grant et al., Nature Microbiology
影响AKK菌双重性的因素及潜在治疗策略。AKK菌的最终效应受到菌株差异、饮食、微生物互作和宿主状态的共同调节。理解这些变量,有助于我们选择最优的治疗应用方案,例如是使用活菌、灭活菌,还是分离的生物活性组分。
精准应用的策略选择
未来的AKK菌疗法,绝非一招鲜,吃遍天,而应是量体裁衣的精准策略。
活菌 vs. 灭活菌
巴氏杀菌的AKK菌是一个极具吸引力的选择。它在欧盟已被批准为新食品原料,安全性更高,避免了活菌定植和基因转移的风险。
多项研究证实,灭活菌依然保留了大部分有益的代谢调节功能,这可能归功于其热稳定的细胞壁成分(如Amuc_1100)。
整体 vs. 组分
直接使用分离的生物活性组分,是更为精准和安全的策略。例如,将Amuc_1100蛋白作为药物开发,或利用其EVs作为治疗载体。
Ioannou 等人的综述强调了 AKK 菌作为“酶学底盘”的巨大潜力。例如利用AKK菌的糖苷酶来改造血细胞表面的ABO血型抗原,展示了从基础研究到生物技术应用的转化潜力。
补充 vs. 内源调节
除了直接补充AKK菌,通过饮食干预(如补充富含多酚的食物、膳食纤维)来扶持宿主内源AKK菌的生长,也是一种温和而有效的方法。
关 键 挑 战
要把 AKK从研究热点真正推进到可精准应用的干预手段,还需要把菌群检测作为贯穿研发—临床—产业化全链条的基础设施,融入以下关键环节:
菌株筛选与鉴定
建立一个标准化的 AKK 菌株功能评价体系,涵盖其代谢谱、免疫调节能力、安全性等多个维度,是实现精准应用的前提。与此同时,需要配套规范化的菌群检测(如 16S/宏基因组与定量检测),用于界定不同菌株在不同微生态背景中的适配性与可重复性,避免同名不同效。
情境依赖性的机制阐明
需要更深入地研究,在不同宿主遗传背景、饮食模式和共存微生物群落的影响下,AKK 菌的功能会发生怎样的改变。这需要更复杂的动物模型(如人源化小鼠模型)和多组学技术的结合;其中,纵向菌群检测是识别“谁在场、谁在协同/拮抗、何时发生生态位迁移”的关键手段,也是将机制与真实个体差异对齐的必要条件。
安全性评估
必须对活菌制剂的抗生素抗性传播风险进行严格评估。开发不含抗性基因的工程菌株,或优先使用灭活菌及组分,是未来的方向。同时,应将菌群检测用于追踪干预后菌群结构扰动、耐药基因负荷变化以及潜在机会致病菌扩增等风险信号,实现从前期评估到使用中/使用后监测的闭环。
递送与生产工艺
作为严格厌氧菌,如何实现 AKK 菌的大规模、低成本培养,并开发出能保护其在通过胃肠道时保持活性的口服制剂,是产业化面临的技术瓶颈。
在这一过程中,菌群检测同样不可或缺:一方面用于生产端的质量控制(纯度、污染菌与批间一致性),另一方面用于应用端的效果评估与分层(基线菌群与 AKK 定植/丰度变化、关键功能菌群响应),从而把工艺参数—活性保持—体内生态学结果真正连接起来,提升可复制性与可监管性。
编辑
图源:doi.org/10.1038/s41579-024-01106-1
通过对这三篇力作的梳理,我们对Akkermansia muciniphila的认知,从一个模糊的有益菌形象,变得立体、丰满,也更加敬畏。它不再是一个简单的标签,而是一个充满动态和变数的生命体。
毒理学有一句名言:剂量决定毒性。在微生物学领域,我们或许可以引申为:情境决定属性。对于AKK菌而言,这个情境包含了我们吃下的每一口食物,我们基因中编码的每一个蛋白,以及我们肠道中与之共存的亿万菌群。
作为科研和从业工作者,我们的核心任务在于阐明这些情境依赖性效应的内在机制。未来研究需要超越简单的相关性分析,通过严谨的实验设计和先进的技术手段,明确AKK菌发挥特定生物学效应的必要条件、充分条件及其剂量-效应关系,解析宿主遗传背景、肠道微生态结构、代谢状态等因素对其功能的调控作用等。
探索之路,道阻且长,但充满希望。与各位同仁共勉。
主要参考文献
Grant ET, Monzel E, Desai MS. Navigating the duality of Akkermansia muciniphila. Nat Microbiol. 2026 Jan;11(1):20-30.
Ioannou A, Berkhout MD, Geerlings SY, Belzer C. Akkermansia muciniphila: biology, microbial ecology, host interactions and therapeutic potential. Nat Rev Microbiol. 2025 Mar;23(3):162-177.
Luo Y, Lan C, Li H, Ouyang Q, Kong F, Wu A, Ren Z, Tian G, Cai J, Yu B, He J, Wright AG. Rational consideration of Akkermansia muciniphila targeting intestinal health: advantages and challenges. NPJ Biofilms Microbiomes. 2022 Oct 17;8(1):81.
谷禾健康
《植物性饮食》
植物性饮食能提供丰富的膳食纤维、多酚和其他生物活性化合物,适当和健康的植物性饮食能够促进有益肠道细菌的生长,增加菌群多样性和短链脂肪酸(SCFAs)的产生,有助于改善肠道屏障功能、减少炎症并降低慢性疾病风险。
然而,值得注意的是,植物性饮食也可能通过生食和未加工食品将环境微生物引入肠道,其中一些微生物可能是机会致病菌或携带抗生素抗性基因,这对健康构成潜在威胁。
此外,健康与不健康植物性饮食的区别也很关键。富含全谷物、水果、蔬菜和豆类的饮食与更有利的肠道菌群组成和代谢结果相关,而富含精制碳水化合物和加工食品的植物性饮食可能产生不利健康的效果。
本文一起了解下植物性饮食对肠道菌群的影响和塑造,尤其在多样性方面,以便更好地理解和实践植物性饮食,在享受植物性饮食带来的健康益处的同时,避免可能的健康风险。
植物性饮食主要由植物来源的食物组成。根据对动物产品的限制程度,可分为不同类型:
– 纯素饮食 (vegan)
仅包含植物性高纤维食物,如水果、蔬菜、谷物、豆类、坚果和种子,完全排除肉类、家禽、鱼类、乳制品、蛋类及所有动物副产品。
– 素食饮食 (vegetarian)
排除肉类和肉类衍生食品,但可能包含鸡蛋或乳制品等动物产品。
– 弹性素食 (flexitarian)
主要以植物性食物为主,但偶尔包含少量肉类或鱼类。
植物性饮食增加多样性和有益菌
研究表明,富含多种植物性食物的饮食始终与更高的肠道微生物多样性相关。总体而言,从植物中引入有益细菌,加上植物纤维,可能培养出更具弹性和功能多样性的肠道生态系统,最终可能导致人类更好的健康结果。
肠道微生物通过发酵促进消化
因为生活在结肠中的肠道微生物通过发酵胃和肠道酶无法降解的食物物质,对消化做出重要贡献。富含植物性食物的饮食能显著改善有益肠道菌群,直接影响人类健康。
最近的研究结果强调,植物性饮食富含益生元,如膳食纤维(包括抗性淀粉),它们作为有益肠道微生物的能量来源。
特定细菌发酵膳食纤维生成SCFAs
膳食纤维是一类植物性碳水化合物,包括非淀粉多糖、木质素和抗性淀粉,它们能逃脱人类上消化道内源性酶的消化。只有特定的肠道菌群,如F. prausnitzii、Roseburia、双歧杆菌和普雷沃氏菌,能在厌氧条件下发酵膳食纤维,产生SCFAs(如乙酸、丙酸和丁酸)作为主要代谢产物。
编辑
一项系统综述显示,纯素和素食饮食通过增加有益细菌同时减少有害细菌,在重塑肠道菌群方面发挥关键作用。在食用植物性饮食的个体中,观察到F. prausnitzii、Roseburia spp.、Coprococcus spp.和Ruminococcus spp.的水平增加,这些细菌都能产生SCFAs,促进更好的肠道健康、减少炎症和改善新陈代谢。
研究还发现普雷沃氏菌属的丰度增加,在某些情况下还有脆弱拟杆菌(Bacteroides fragilis),它们在纤维消化和免疫调节中起关键作用。但是要注意,不合理的植物性饮食也会使得普雷沃氏菌属或有些情况下的脆弱拟杆菌过度增殖,影响菌群平衡和进一步的消化免疫状况。
短链脂肪酸:肠道菌群的黄金代谢物
短链脂肪酸(SCFAs)已被广泛研究为关键的肠道菌群代谢物。人类由于缺乏必要的酶而无法发酵某些碳水化合物,而肠道菌群则能合成诸如丙酸-CoA转移酶和丙醛脱水酶等酶,将这些碳水化合物转化为SCFAs。
胃肠道中的主要SCFAs是乙酸、丙酸、丁酸(占总量的≥95%):
乙酸
通过Wood-Ljungdahl途径和乙酰-CoA途径合成,相关细菌包括乳酸杆菌属、双歧杆菌属、 Akkermansia muciniphila、拟杆菌属、普雷沃氏菌属、瘤胃球菌属、链球菌属等。
丙酸
由Phascolarctobacterium succinatutens、拟杆菌属、Dialister、Megasphaera elsdenii、韦荣球菌属、AKK、Coprococcus catus、Roseburia inulinivorans、Ruminococcus obeum、沙门氏菌属等通过琥珀酸、丙烯酸和丙二醇途径生成。
丁酸
主要由Faecalibacterium prausnitzii、Roseburia、Eubacterium rectale、Clostridium leptum、Eubacterium hallii、Coprococcus eutactus、Anaerostipes caccae、C. catus等通过丁酰-CoA:乙酸CoA转移酶和磷酸丁酰转移酶/丁酸激酶途径产生。
短链脂肪酸在维持肠道屏障完整性、调节免疫反应和支持代谢健康方面发挥着关键作用,因此与纯素和素食饮食相关的独特肠道菌群特征有助于产生抗炎作用和改善代谢结果。
并非所有植物性食物都同样健康
一些植物性食物可能增加健康风险。为解决这些问题,研究人员创建了:
另一项研究发现,较高的hPDI与Bacteroides cellulosilyticus和Eubacterium eligens的丰度增加相关,这两种细菌都有助于积极的代谢健康。
相反,较高的hPDI显示Ruminococcus torques和Ruminococcus gnavus的水平降低,这些细菌种类已知会引起炎症反应和不利的代谢结果。
高hPDI饮食促进有益微生物,降低代谢风险
高hPDI还与肠道微生物途径的富集相关,这些途径参与支链氨基酸(包括L-异亮氨酸和L-缬氨酸)的生物合成,以及丙酮酸发酵生成异丁醇,这些都与较低的代谢风险评分相关。相反,低hPDI与嘌呤碱基降解和脂质生物合成相关的途径相关,这与不太有利的代谢特征相关。
这些结果表明,坚持健康的植物性饮食能促进有益的肠道菌群和代谢健康,而不健康的植物性饮食可能产生相反的影响。
植物性饮食与肠道菌群的关系
一项大规模调查研究了杂食者、素食者和纯素者的肠道菌群特征,分析了来自5个独立全球队列的21,561人的数据。
研究表明,植物性饮食驱动肠道菌群组成,有利于参与纤维发酵和SCFAs合成的微生物物种。与杂食者相比,纯素饮食的人总体肠道微生物多样性较低,但有益物种(如毛螺菌科、Butyricicoccus spp.和Roseburia hominis)的较高,这些物种有助于减少炎症和增强肠道健康。
研究局限与未来方向
然而,该研究也存在局限性:参与者被分为杂食者、素食者或纯素者时,没有考虑饮食质量,例如全食物纯素与加工纯素的区别。尽管使用了健康植物性饮食指数(hPDI),但它没有考虑纤维摄入量的差异,而纤维摄入量可能对肠道菌群产生不同影响,并可能为积极的代谢健康提供机制见解。
大多数关于植物性饮食对肠道菌群影响的研究持续时间较短,从几天到13个月不等。虽然短期饮食干预可以快速改变微生物组成,但它们可能无法提供长期稳定性和更广泛健康影响的完整图景。未来需要更多长期研究来探索植物性饮食对肠道菌群的持久影响。
多酚:植物中的抗氧化战士
植物性饮食富含多种植物生物活性化合物,包括膳食纤维、多酚、类胡萝卜素、维生素和生物活性肽,这些化合物选择性地促进有益肠道细菌的生长和活性,从而有助于宿主健康。
据观察,富含叶菜类蔬菜、浆果、豆类、小扁豆和燕麦等植物性食物的饮食支持共生细菌的生长并提高SCFAs水平。
编辑
多酚是一类广泛而多样的天然化合物,大量存在于植物中,以其强大的抗氧化和抗炎特性为特征。它们可大致分为类黄酮和非类黄酮(酚酸和芪类)。
大多数膳食多酚在小肠中不被吸收,而是在结肠中进行微生物代谢,产生生物活性代谢物如尿石素,这些代谢物随后可被吸收到体内,并通过影响代谢、免疫甚至神经通路(通常通过复杂的肠-肝-脑轴)发挥显著的健康益处。
这些化合物似乎能增加人类肠道中益生菌如乳酸杆菌和双歧杆菌的丰度。据报道,来自浆果和蔓越莓等水果的多酚对梭状芽胞杆菌和大肠杆菌等致病菌具有抗菌活性,同时富集有益菌。
一些动物和人类研究表明,多酚可能将厚壁菌/拟杆菌比率转向更健康的平衡,这种平衡在肥胖和代谢紊乱中常常被破坏。通过增加SCFA水平和调节胆汁酸途径,多酚可以改善肠道屏障完整性,减少炎症,并支持代谢健康。
类胡萝卜素:未被充分探索的肠道调节剂
膳食纤维和多酚是研究最广泛的用于调节肠道菌群和促进肠道健康的生物活性化合物。相比之下,其他生物活性化合物如类胡萝卜素(β-胡萝卜素、番茄红素、虾青素、叶黄素、玉米黄质和岩藻黄质)在这方面的研究仍不充分。
类胡萝卜素具有抗炎和抗氧化特性,研究表明它们可能促进有益肠道细菌,增强肠道屏障功能,减少炎症。然而,大多数证据来自动物研究,剂量、干预持续时间各不相同,且对SCFAs产生的评估有限。
这突出了需要精心设计的人类干预研究,以更好地了解类胡萝卜素对肠道健康的影响。未来的研究应侧重于标准化的人体试验和综合多组学方法,以阐明特定类胡萝卜素和其他生物活性化合物影响肠道微生物多样性、屏障功能和宿主健康结果的机制。
不同植物性食物对肠道菌群的独特影响
不同的植物性食物含有独特的生物活性化合物组合,因此对肠道菌群有不同的影响:
-浆果类
富含花青素等多酚,促进双歧杆菌和乳酸杆菌生长。
-全谷物
含有丰富的膳食纤维和抗性淀粉,促进产丁酸菌如Faecalibacterium prausnitzii和Roseburia spp.
-豆类
含有棉子糖家族低聚糖,促进双歧杆菌增殖
-坚果和种子
富含不饱和脂肪酸、膳食纤维和多酚,增加 Akkermansia muciniphila等有益菌
-十字花科蔬菜
部分研究显示有调节拟杆菌丰度的潜力,含有硫代葡萄糖苷,经肠道菌群代谢为具有抗癌活性的异硫氰酸酯。
因此,多样化的植物性饮食能够提供更广泛的生物活性化合物,支持更丰富和多样化的肠道菌群,从而带来更多健康益处。
除了提供营养价值和塑造肠道菌群的生物活性次生代谢物外,植物性饮食还作为影响微生物多样性的来源。最近的研究首次提供了水果和蔬菜微生物群可能传播到人类肠道的证据。
在这项研究中发现的人类肠道与水果/蔬菜之间的共享微生物包括假单胞菌(Pseudomonas)、鞘氨醇单胞菌(Sphingomonas)、气单胞菌(Aeromicrobium)和泛菌(Pantoea)。
尽管这些细菌中的一些具有促进植物生长的特性,但它们可能在人类肠道中引起感染,特别是在免疫功能低下的个体中。
通过植物性饮食将土壤微生物群转移到人类肠道
编辑
图示显示微生物从土壤转移到植物,最后植物性饮食促进植物微生物群直接转移到人类肠道。
另外一项采用物种水平鉴定的跨国队列研究发现,食用植物性饮食的个体,特别是纯素者,肠道中通常与土壤和植物相关的微生物(包括Enterobacter hormaechei、Citrobacter freundii、Raoultella ornithinolytica和肺炎克雷伯菌)的较高。这是由于摄入更多的生的和最低限度加工的植物性食物,这些食物携带环境微生物。
编辑
在农业环境中,这些细菌通过溶解磷等营养物质、固氮、产生植物激素(包括吲哚-3-乙酸)以及作为植物病原体的生物防治剂,发挥着至关重要的作用。另一方面,它们在人类中可能是共生菌或机会致病菌,引起从尿路感染到败血症的广泛感染。这些细菌还携带抗菌素耐药基因,导致对抗生素的强烈耐药性。
下面总结了植物微生物在植物中的作用
和对人类的可能潜在风险(仅供参考)
编辑
我们食物中的微生物群落可能受到不同食品加工方法和更广泛的农业实践的影响。微生物从植物到人类的传播表明,植物及其土壤环境可以作为这些细菌的储存库。食用未加工或最低限度加工的植物性饮食可能是将共生菌或机会致病菌转移给人类的潜在载体。烹饪可能是使食物中天然存在或通过农业实践引入的抗菌化合物变性的途径。
小鼠模型研究:生食与熟食的微生物差异
一项对小鼠模型的研究表明,小鼠食用生的或熟的植物性饮食后,肠道菌群存在显著差异。根据饮食的不同,小鼠的肠道细菌负荷有所不同;食用生块茎的组比食用熟块茎的组细菌负荷更低。这种微生物负荷的下降与微生物细胞损伤增加和微生物活性降低有关。
人体研究
一项短期人体研究检查了在生食和熟食植物性饮食之间切换如何影响肠道菌群组成。结果表明,食用熟食后48小时内,肠道菌群发生了显著变化。食用生食和熟食的个体之间细菌类群丰度的差异突出了食品加工对肠道菌群结构和功能的影响。
农业实践通过减少整体多样性和选择性地支持化学/抗生素抗性细菌物种,改变土壤微生物组成。农业环境中的抗生素耐药性主要由肥料、废水等的应用驱动。
肥料作为抗生素耐药细菌的储存库
农业中广泛使用肥料是抗生素耐药细菌及其抗生素抗性基因的主要储存库。根际、内生圈和叶际内的微生物群落密切相关,形成一个统一的生态系统,对人类食物链至关重要。
抗生素耐药细菌在植物中的传播及其对人类的影响
抗生素耐药细菌可以侵入植物根部,进入茎和叶组织,或与内生菌交换抗性基因,促进植物内抗生素抗性的扩展。
人类通过食用可食用植物获得这些抗性基因。长期摄入这些抗性基因可能与人类致病性增加有关,因为这些基因可能通过水平基因转移被肠道的一些机会致病菌获得。然而,对与植物相关的抗生素耐药组及其向人类转移的理解仍处于初级阶段。
这些发现强调了土壤、植物和人类肠道中微生物群落的相互联系。因此,维持土壤健康对于健康的植物至关重要,而健康的植物又有助于平衡的肠道菌群。
多篇研究警告说,缺乏适当饮食规划的植物性饮食可能导致关键营养素(如维生素B12、维生素D、铁、钙、锌、二十碳五烯酸(EPA)和二十二碳六烯酸(DHA))的缺乏,可能损害肠道和整体健康。
考虑到遗传因素和微生物多样性的差异,即将进行的研究应阐明植物性饮食对个体肠道和代谢健康的影响。
营养建议
对于遵循植物性饮食的人,建议关注以下营养素的摄入:
-维生素B12
主要存在于动物性食物中,植物性饮食者应考虑强化食品或补充剂
-铁
植物性来源的铁(非血红素铁)吸收率较低,建议与富含维生素C的食物一起食用以提高吸收率
-钙
可从强化植物奶、豆腐(用钙盐制作)、绿叶蔬菜中获取
-Omega-3脂肪酸
可从亚麻籽、奇亚籽、核桃中获取ALA,以及其他富含DHA/EPA等食物
-锌
全谷物、豆类、坚果是主要来源,发酵食品可提高锌的生物利用率
编辑
✦ 如何开始并坚持健康的植物性饮食?
对于想要尝试植物性饮食的人,建议循序渐进:
-从餐盘开始
将餐盘的一半分配给蔬菜和水果,四分之一给全谷物,四分之一给植物蛋白来源
-增加多样性
尝试不同种类的植物性食物,每周至少尝试一种新的水果、蔬菜或全谷物
-注重全食物
优先选择完整的、未加工的食物,减少精制食品和添加糖
-合理搭配
结合不同植物蛋白来源(如豆类和谷物)以获得完整的氨基酸谱
-适当烹饪
虽然生食有其益处,但适当烹饪可以减少潜在病原体风险,同时提高某些营养素的生物利用率
✦ 平衡植物性饮食与食品安全
为了最大限度地发挥植物性饮食的益处同时减少风险:
-清洗生食
彻底清洗所有生水果和蔬菜,去除表面的土壤和微生物
-适当烹饪
对可能含有较多环境微生物的食物(如芽菜、生豆类)进行适当烹饪
-注意高风险人群
免疫功能低下者应格外小心生食,考虑咨询医生或营养师
-多样化来源
从不同来源购买农产品,减少单一来源的风险
-考虑有机选择
在可能的情况下,选择有机种植的农产品,减少农药暴露
编辑
✦ 个性化植物性饮食策略
每个人的肠道菌群都是独特的,因此对植物性饮食的反应也可能不同。建议:
通过这些策略,我们可以充分利用植物性饮食对肠道菌群和整体健康的益处,同时最大限度地减少潜在风险,踏上个性化的健康之旅。
主要参考文献
Anand R, Sahil R, Jain M, Maurya GK, Kharat AS. Plant-Based Diet as a Precursor to Human Gut Diversity. J Nutr. 2025 Nov 26:101251.
Fackelmann G, Manghi P, Carlino N, Heidrich V, et al., Gut microbiome signatures of vegan, vegetarian and omnivore diets and associated health outcomes across 21,561 individuals. Nat Microbiol. 2025 Jan;10(1):41-52.
Ramaboli MC, Ocvirk S, Khan Mirzaei M, et AL., Diet changes due to urbanization in South Africa are linked to microbiome and metabolome signatures of Westernization and colorectal cancer. Nat Commun. 2024 Apr 20;15(1):3379.