-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
肠易激综合征(IBS)是一种肠—脑互动障碍,表现为反复腹痛,并伴有排便频率或性状改变。约三分之一的炎症性肠病(IBD)患者会出现相关症状,导致生活质量下降、心理负担加重和日常功能受损,也容易与小肠细菌过度生长、胆汁酸吸收不良及炎症后并发症混淆。
传统观点曾把IBD与IBS视为”非此即彼”的关系——有器质性炎症就不应再诊断功能性疾病。然而越来越多的证据表明,即便炎症进入缓解期,患者仍可能经历持续而真实的肠道症状,其背后是肠道屏障、菌群、神经信号等多层面的微妙改变。本文将带您解析这一“重叠地带”。
IBS:全球性的常见肠道困扰
肠易激综合征(IBS)在全球范围内都属于高发病,全球患病率约为10%–15%。这意味着每十个人中就有一两人可能受其困扰。
中国约每十人中有一人患IBS,且多见于中青年
中国的流行病学调查显示,IBS患病率约为6.5%–10%,且呈逐年上升趋势。它可发生于任何年龄段,但以中青年(18–59岁)更为常见,女性患病率略高于男性。
IBS虽不致命,却会造成巨大的医疗资源消耗——反复就诊、多次检查、长期用药。此外,IBS患者常伴有焦虑、抑郁等心理共病,以及消化不良、慢性疲劳等功能重叠综合征,进一步增加了诊疗的复杂性。
肠易激综合征的表现及病因
这种疾病是一种肠道与大脑相互作用的障碍,其特征为排便习惯的改变(如便秘、腹泻或两者兼有),以及腹痛症状——这些腹痛在排便时可能会缓解,也可能加重。
其特点是常规医学检查无法发现明确的结构或生化异常。发病机制可用生物—心理—社会模型解释,即生物、心理和社会因素共同参与疾病的发生与发展(见下图)。
编辑
doi.org/10.3390/jcm15010116
IBD 患者中 IBS 的患病率
炎症性肠病(IBD)是胃肠道慢性炎症性疾病,主要包括克罗恩病和溃疡性结肠炎。两者在炎症部位、肠壁受累范围及临床表现等方面均存在差异。
注:与肠易激综合征类似,IBD的病因尚未完全明确,遗传易感性和免疫失调被认为是主要影响因素。
三分之一的IBD患者会出现IBS样症状
约三分之一的慢性溃疡性结肠炎患者存在IBS样症状,这一比例远高于普通人群。研究显示,IBD患者发生IBS样症状的风险显著升高,风险比(HR)高达20.1(95%置信区间,p=0.005),且克罗恩病患者的发生率高于溃疡性结肠炎患者。
更值得关注的是,部分被认为处于”静止期”或”缓解期”的IBD患者,若同时存在IBS样症状,其肠道中可能存在常规检查未能发现的亚临床炎症或低度炎症活动。因此,IBD患者中”真正的IBS”与”残留炎症”的鉴别,成为临床的一大挑战。
检验肠黏膜炎症的方法
内镜检查是评估肠黏膜炎症的“金标准”。以内镜评估时,IBS样症状的患病率为23.5%,低于采用疾病活动度指数和粪便钙卫蛋白评估所得的33.6%和35.1%。
但内镜和粪便钙卫蛋白均无法全面评估肠黏膜免疫激活。即使检查显示疾病缓解,患者仍可能存在:
此外,IBS 样症状的患病率还受IBS诊断工具影响。Manning标准和Rome I~IV标准均基于症状制定,最初主要适用于无器质性胃肠道疾病者,直接用于IBD患者可能存在局限。
IBD患者即使符合Rome标准,其症状也可能源于其他IBD相关病理生理过程,而非真正的肠—脑互动障碍(DGBI)。例如:
编辑
doi.org/10.3390/jcm15010116
具有挑战性的过渡性视角
传统观点认为,只有排除可解释症状的器质性胃肠道疾病(如炎症性肠病,IBD)后,才能诊断肠易激综合征(IBS)。
如今,主流神经胃肠病学逐渐认为,IBD患者的IBS样症状可能与疾病活动度不一致,即肠黏膜炎症不足以解释其胃肠道症状。
早在1983年,就描述了这种“功能性”与“器质性”疾病界限模糊的现象:33%的缓解期溃疡性结肠炎患者符合基于症状的IBS诊断标准。该研究将“缓解期”定义为仅使用柳氮磺吡啶维持治疗,且柔性乙状结肠镜检查未见出血、黏液或接触性出血。
Tips
传统上,IBS 与 IBD 被视为互相排斥:有 IBD 就不应诊断 IBS。但越来越多证据显示,即使 IBD 的炎症已得到控制、处于缓解期,患者仍可能存在难以由炎症解释的 IBS 样胃肠症状。研究发现约三分之一缓解期溃疡性结肠炎患者符合 IBS 症状标准,提示两类疾病的界限并非绝对。
IBD病情监测方法多样,全球临床最常用的四种方式是粪便钙卫蛋白检测、横断面影像学检查、胃肠道内镜检查和患者症状评估。
编辑
doi.org/10.3390/jcm15010116
粪便钙卫蛋白:无创的炎症”侦察兵”
粪便钙卫蛋白是反映中性粒细胞迁移至胃肠道组织的指标。胃肠病学会一般认可其为一种经过验证的、无创的生物标志物,可用于评估 IBD 的内镜下及组织学炎症活动。
粪便钙卫蛋白判断疾病活动度的敏感性和特异性,会因所采用的临界值不同而变化。一项荟萃分析显示:
美国胃肠病学会采用 150 μg/g 作为参考临界值,用于判断克罗恩病或溃疡性结肠炎患者的胃肠道症状是否与炎症加重有关。
中国的核心判断大致为(仅供参考):
需要注意的是,粪便钙卫蛋白对小肠炎症的敏感性可能不足,而小肠炎症在克罗恩病中较为常见。因此,粪便钙卫蛋白正常并不能完全排除肠黏膜炎症。
横断面影像学检查
横断面影像学检查,如磁共振小肠造影和肠道超声,可以较完整地观察小肠,并评估 IBD 相关的肠外疾病。
肠道超声可能成为克罗恩病影像监测的新选择
磁共振成像被认为是监测小肠克罗恩病的金标准影像学方法。近二十年来,研究者越来越重视利用磁共振评估小肠运动功能。该方法有助于判断炎症负荷,但目前不能预测患者在接受生物制剂治疗一年后的治疗反应或是否达到缓解。
由于反复进行磁共振检查存在等待时间长、费用高等问题,床旁肠道超声逐渐受到重视。它具有费用较低、检查迅速、患者耐受性较好等优点,适合用于IBD 的动态监测。
一项最新系统综述总结了针对克罗恩病和溃疡性结肠炎建立的 23 种肠道超声评分系统。其中,83%的研究以内镜检查作为金标准。23种评分中有13种经过验证,但只有7~8种在两个以上的独立患者队列中得到验证。
这些评分系统最常纳入的指标包括:
床旁肠道超声在 IBD 中具有重要作用,可以评估治疗反应、提供预后信息,并帮助指导临床决策。
例如:
内镜评估
临床实践中广泛使用溃疡性结肠炎 Mayo 疾病活动指数。其中,内镜评分主要依据以下表现进行评估:
最初的 Mayo 评分还包括两项患者报告结局:
其他研究团队还提出了以下替代性评分工具:
组织学评估
目前,对于溃疡性结肠炎和克罗恩病的组织学缓解尚无统一定义。因此,在 IBD 管理中,组织学缓解目前属于辅助目标,而不是首要治疗目标。
此外,组织学缓解是否能够带来明确的预后获益,目前仍未得到证实。
患者报告结局指标
目前已有20种不同的患者报告结局指标,被用于评估 IBD 疾病活动度。但其中没有任何一种完全符合美国食品药品监督管理局(FDA)推荐的标准。
只有两种评分是在患者参与下开发的:
患者报告结局可能受到抑郁和焦虑的影响
抑郁症状较重的患者,更容易被判定为患有活动性 IBD。因此,依据 PROMs 判断疾病活动度时,应结合患者的心理症状进行解释。
近年来开发的两种 PROMs 可能较少受到伴随心理疾病的影响:
小结
区分IBD 活动、IBS 样症状和真正的 IBS,不能依赖单一检查:
肠易激综合征(IBS)等肠—脑互动异常疾病,通常是多种因素共同作用的结果,包括:
肠易激综合征的病理生理机制
编辑
doi: 10.3390/ijms262110598.
研究显示,无论 IBD 处于活动期还是缓解期,均可能影响上述各个环节。这些共同的病理机制,可能解释了IBS 与 IBD 之间的关联。
肠道运动改变
两项重要研究考察了 IBD 患者的肠道运动功能。与健康人相比,溃疡性结肠炎患者表现为:
溃疡性结肠炎患者排便控制能力受影响
溃疡性结肠炎患者静息时直肠运动明显减弱,但肠腔扩张可引起炎症直肠异常强烈收缩,增加排便控制难度,甚至导致失禁。
活动期患者的直肠顺应性明显降低,即直肠扩张和容纳粪便的能力减弱;缓解期患者则与健康人无明显差异。因此,活动期患者排便频繁、急迫,可能与直肠顺应性降低和高敏感有关。
上皮屏障破坏与黏膜免疫功能异常
组织活检显示,与没有 IBS 样症状的缓解期 IBD 患者或健康人相比,IBS 患者以及伴有 IBS 样症状的缓解期 IBD 患者,其上皮屏障完整性相关标志物——如 ZO-1 和 α-连环蛋白(α-catenin)——的表达较低。
肠道免疫激活在肠易激综合症中的作用
编辑
Stoyanova M,et al.Applied Sciences.2025
溃疡性结肠炎患者肠道通透性增加
这与另一项发现一致:缓解期溃疡性结肠炎患者存在结肠细胞旁通透性增加;混合型 IBS 患者也可能出现类似改变,但程度相对较轻。
黏膜中嗜酸性粒细胞数量增加及其活化,以及肥大细胞等其他免疫调节因素,可能促进肠道通透性增高,即通常所说的“肠漏”现象。
肠道菌群失衡
关于肠道菌群失衡,可以查看谷禾此前发布过的相关文章内容:
肠道菌群失衡的症状、原因和自然改善
炎症性肠病中宿主与微生物群的相互作用
肠道菌群失调与炎症性肠病的关联
多项研究探讨了肠道菌群在 IBS 和 IBD 发生发展中的作用,以及通过调节菌群进行治疗的可能性。宏基因组鸟枪法测序能够依据以下特征区分 IBS 与 IBD:
不过,目前尚缺乏研究比较以下三类人群的肠道菌群差异:
未来研究有望确定:IBD 患者中的 IBS 样症状是否具有独特的菌群特征,并寻找能够缓解持续性胃肠道症状的新型微生物治疗靶点。
肠易激综合征的多种因素
编辑
Stoyanova M,et al.Applied Sciences.2025
肠道—中枢神经系统的信息处理
肠神经系统主要由两个神经丛组成:
肠道炎症可能导致肠神经元丢失,并引起肠神经节——即位于胃肠道壁内的神经细胞集合——发生形态变化。这些改变可能促进内脏高敏感,并参与 IBS 症状的形成。
此外,心理应激也可能改变:
这些变化可能是缓解期 IBD 患者仍持续存在 IBS 样症状的原因之一。
先排除,再诊断,分层管理
当 IBD 患者出现急性排便功能改变时,首先必须考虑IBD 复发或炎症活动加重。
排除肠粘连、结石等疾病
在排除黏膜炎症复发、确认不需要升级免疫抑制治疗后,应通过详细病史和有针对性的检查,排查其他急性胃肠道症状原因,如:
积极诊断判断IBS
对于长期存在胃肠道症状的患者,IBS 的诊断应采取积极诊断模式,而不是单纯依靠排除其他疾病。也就是说,应根据典型症状主动判断 IBS。这样有助于:认可并解释患者的症状体验、减少焦虑、更早进行针对性治疗。
编辑
doi.org/10.3390/jcm15010116
但在 IBD 患者中采用这种诊断方式更具挑战性,因为他们更容易出现一些能够模拟 IBS 的其他疾病,包括:
针对缓解期 IBD 患者 IBS的主要干预措施
目前,专门针对缓解期 IBD 患者 IBS 样症状、并在随机对照试验中进行研究的干预措施主要包括:
目前没有充分证据表明,缓解期 IBD 患者的 IBS 必须采用与无 IBD 人群完全不同的管理方式。因此,通常应依据国际指南中的 IBS 一般治疗原则,结合以下两类措施:
非药物治疗:饮食调整、体育活动、心理治疗等;
编辑
doi.org/10.3390/jcm15010116
药物治疗:神经调节药、解痉药、止泻药、泻药等。
在炎症性肠病中管理肠易激综合征的药理策略
编辑
doi.org/10.3390/jcm15010116!
应特别关注心理因素
在 IBD 患者中,焦虑和抑郁的发生率分别可达约 三分之一和四分之一。这两种心理状况都与 IBD 患者的 IBS 样症状密切相关。
情绪障碍病史尤其能预测溃疡性结肠炎患者出现 IBS 样症状,但这一关系在克罗恩病中并不明显。
治疗方面,除常规药物外,可考虑:
这些措施共同体现了 IBS 的生物—心理—社会综合治疗模式。
腹痛的管理
至少四分之一的缓解期IBD患者报告存在慢性腹痛,42%的IBD患者未能获得腹痛治疗。缓解期克罗恩病患者的腹痛可能比缓解期溃疡性结肠炎更常见(克罗恩病:轻度腹痛与中重度腹痛比例较高;溃疡性结肠炎:轻度腹痛23.4%,中重度腹痛10.1%)。并且缓解期IBD中存在腹痛与生活质量下降有关。
腹痛的非药物治疗
腹痛的非药物治疗中,较有前景的方法包括:脑—肠行为治疗(可改善整体IBS症状和腹痛,也可能缓解焦虑、抑郁等心理共病)、低FODMAP饮食、放松训练。
•脑—肠行为治疗:伴有慢性腹痛的 IBD 患者更容易出现焦虑和抑郁。已有至少六项研究评估行为治疗,其中较有前景的方法包括:放松训练;改变与症状相关的认知。
不过,英国 IBD Boost 研究发现,接受为期 12 次、由专业人员支持的线上认知行为自我管理课程后,实验组与常规护理组在 6 个月时的腹痛评分没有明显差异。
•低 FODMAP 饮食:在 IBS 的各种饮食疗法中,低 FODMAP 饮食的证据基础较为充分。该饮食通常分为两个阶段:
荟萃分析及两项针对缓解期 IBD 患者的前瞻性研究均支持低 FODMAP 饮食有助于减轻腹痛。
一项多中心随机非劣效性试验显示,地中海饮食可以作为 IBS 的一线饮食干预,但其在“IBS 合并缓解期 IBD”患者中的效果尚未得到确认。
•体育锻炼:已有证据支持体育活动有助于改善 IBS 症状,但运动是否能够有效治疗 IBD 患者合并的 IBS,目前仍未得到证实。
腹痛的药物治疗
•阿片类药物(不建议):不建议使用阿片类药物治疗慢性腹痛。没有证据表明阿片类药物能够改善克罗恩病患者的腹痛或生活质量。
此外,IBS 患者使用阿片类药物与更严重的心理损害及更多医疗资源使用有关,还可能诱发或加重其他肠—脑互动异常疾病。
•脑—肠神经调节药物:一项纳入28项随机对照试验的荟萃分析支持三环类抗抑郁药(TCA)用于改善 IBS 的整体症状或腹痛;选择性 5-羟色胺再摄取抑制剂(SSRI)可能也能在一定程度上缓解腹痛。
在伴有 IBS 的缓解期 IBD 患者中,TCA 可中度改善整体健康感;这些患者中超过80%存在腹痛。TCA 作用于多种受体,可能引起:口干、嗜睡、视物模糊、疲劳、便秘。
•解痉药:东莨菪碱、双环维林和薄荷油等解痉药,可能通过减少平滑肌收缩及降低内脏敏感性来缓解 IBS 症状。
但目前支持其用于 IBS 腹痛的证据质量“非常低”,间接比较显示其疗效可能不如 TCA。
便秘的管理
约50%的溃疡性结肠炎患者存在“溃疡性结肠炎相关便秘综合征”,有时也称为“近端便秘”。这种情况通常发生在活动性左半结肠炎或远端结肠炎患者中。
其表现包括:
IBD 相关便秘可能与结肠神经支配异常、黏液分泌减少及肛门直肠协同障碍有关。
便秘的非药物治疗
•饮食:由于缺乏充分证据,目前指南不推荐某种完整饮食方案,例如高纤维饮食,作为 IBD 便秘的明确治疗方法。现有大多数饮食建议的证据质量仅为“非常低”或“低”。
•体育锻炼:体育活动不足会增加便秘风险,运动可能改善便秘,并缓解 IBD 和 IBS 患者常见的疲劳。
•盆底生物反馈治疗:生物反馈治疗基于操作性条件反射,旨在帮助患者认识排便障碍,训练排便时增加腹内压并放松盆底肌,以及在治疗师指导下通过气囊模拟排便。其对有、无 IPAA 的 IBD 患者有效率分别约为 86% 和 70%。
便秘的药物治疗
可使用泻药治疗便秘,通常建议采取逐步加药的方式。泻药包括:
•渗透性泻药:氧化镁、聚乙二醇;
•刺激性泻药:番泻叶、比沙可啶;
•促分泌剂:鲁比前列酮、利那洛肽;
•选择性 5-HT4 受体激动剂:普芦卡必利。
腹泻的管理
腹泻是IBD患者最常见的症状之一。一项研究中,30.6%的患者每天排便超过4次。缓解期IBD腹泻可能与肠道菌群多样性降低及结肠推进活动增强有关。
腹泻的非药物治疗
针对 IBS-D 和功能性腹泻,欧洲专家对以下治疗达成较强共识:
体育活动以及益生元、益生菌或合生元也可能有帮助。
腹泻的药物治疗
美国胃肠病学会对以下药物给出了条件性推荐:
注释:
洛哌丁胺和 eluxadoline 是阿片受体激动剂,能够抑制肠道运动。没有胆囊,或已知/疑似胆道或胰管梗阻的患者,严格禁止使用 eluxadoline。
利福昔明是一种不可吸收抗生素,美国已批准其用于 IBS-D。五项对照试验的荟萃分析显示,其治疗获益明确,治疗获益人数需治疗数(NNT)为9;北美指南支持其用于 IBS-D。
Alosetron 是选择性 5-HT3 受体拮抗剂,FDA 批准其用于女性 IBS-D 患者,但目前没有充分的性别特异性理由说明它只能用于女性。另一种 5-HT3 受体拮抗剂昂丹司琼,也有较有力的证据支持其用于 IBS-D。
研究显示,IBS-D 患者可能比其他 IBS 亚型患者更容易对低剂量 TCA 产生反应。TCA 可能通过抗组胺作用改善腹泻。选择性 H1 受体拮抗剂依巴斯汀也被发现能够减少 IBS 患者稀便的次数。这提示组胺生成和肥大细胞活性可能参与非活动性 IBD 的持续性腹泻。
关于解痉药治疗 IBS-D 的证据,主要来自“整体 IBS 症状缓解”,而不是腹泻本身。某项比较不同剂型薄荷油与安慰剂的研究发现,三组在粪便性状和排便频率方面均无显著差异,提示薄荷油可能不能改善腹泻。
此外,在 IBD 患者中,解痉药使用与更高的阿片类药物使用率及持续性腹痛有关,即使校正疾病严重程度后仍然如此。因此,解痉药可能疗效有限,甚至可能加重部分症状,使用时应谨慎。
粪便失禁的管理
粪便失禁是指反复且无法控制地排出粪便,至少影响 14% 的 IBD 患者,发生率接近社区成年人的两倍。
排便习惯改变,尤其是腹泻,与粪便失禁密切相关。评估时,以下信息最好通过连续排便日记记录,而非仅依靠一次性问卷。
IBD 患者发生粪便失禁的原因可能包括:
粪便失禁的非药物治疗
非手术治疗包括:
手术或介入治疗可包括:
目前结肠造口术或肛门括约肌成形术已较少使用。
粪便失禁的药物治疗
腹泻和直肠紧迫感是粪便失禁的重要危险因素,因此控制腹泻是关键。可考虑的药物包括:
腹胀的管理
腹胀是患者主观感受到的腹部饱胀、肿胀或气体滞留,可发生于腹部任何部位。腹胀不同于腹部膨隆,后者表现为腹围明显增大,患者常形容为“像气球”或“像怀孕”。
至少20%的缓解期 IBD 患者有腹胀症状,其发生率与 IBS 患者无明显差异。
腹胀的非药物治疗
•低 FODMAP 饮食:在功能性消化不良和 IBS 研究中,与传统饮食建议相比,低 FODMAP 饮食能够改善腹胀和生活质量。在伴有 IBD 和肠—脑互动异常症状的患者中,腹胀可能是对低 FODMAP 饮食反应最好的症状。
•脑—肠行为治疗:虽然相关证据主要来自 IBS,但心理治疗可能对各种肠—脑互动异常疾病都有帮助,包括以腹胀为主要表现的疾病。
注:一项随机对照试验显示,完成为期8周的正念减压训练后,患者在课程结束3个月时的腹胀严重程度有所改善。
•生物反馈治疗:部分腹胀或明显腹部膨隆患者存在腹膈协同失调,即膈肌收缩、腹壁放松的一种适应不良性神经肌肉反应。
一项研究提示,在对饮食干预没有反应的腹胀患者中,超过60%存在排便障碍特征,而这些患者可能从盆底生物反馈治疗中获益。
腹胀的药物治疗
利福昔明可能缓解腹胀,但 FDA 目前仅批准其用于 IBS-D 的两周疗程。
荟萃分析支持部分便秘患者使用解痉药和促动力药;促分泌剂及SSRI也可能有助于改善腹胀。
肠易激综合征(IBS)型症状影响了大约三分之一的慢性溃疡性结肠炎患者,严重降低了患者的生活质量,同时也给医生带来了诊断上的挑战。
医生需将其与小肠细菌过度生长、胆汁酸吸收不良、乳糜泻及其他炎症后并发症相鉴别。IBS 与溃疡性结肠炎的共存体现了功能性与器质性胃肠疾病的复杂“共生关系”,可能与残余炎症、脑肠信号异常、肠道菌群失调及心理社会因素共同相关。
未来研究应结合多种生物标志物进行评估,包括黏膜免疫表型、微生物群与代谢特征、神经影像学及屏障功能指标,以建立不单纯依赖症状的单一诊断方法。
临床上应采取以症状为中心的积极诊断策略,同时仔细排除活动性炎症,并据此制定治疗方案。现有证据支持参照一般 IBS 管理原则,采用饮食干预、脑肠行为疗法和神经调节剂,并关注疾病的心理社会影响。
未来应通过更精准的生物标志物动态监测持续炎症,以改善诊断并优化治疗指导。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献:
Butt MF, Reghefaoui MH, Benedict AS, Reghefaoui M, Al-Jabir H, Shaikh A, Vojtekova K, Moran GW, Corsetti M, Aziz Q. Irritable Bowel Syndrome in Inflammatory Bowel Disease: An Evidence-Based Practical Review. J Clin Med. 2025 Dec 24;15(1):116.
Aggeletopoulou I, Papantoniou K, Pastras P, Triantos C. Unraveling the Pathophysiology of Irritable Bowel Syndrome: Mechanisms and Insights. Int J Mol Sci. 2025 Oct 30;26(21):10598.
Stoyanova, M.; Gledacheva, V.; Nikolova, S. Gut–Brain–Microbiota Axis in Irritable Bowel Syndrome: A Narrative Review of Pathophysiology and Current Approaches. Appl. Sci. 2025, 15, 6441.
谷禾健康
编辑
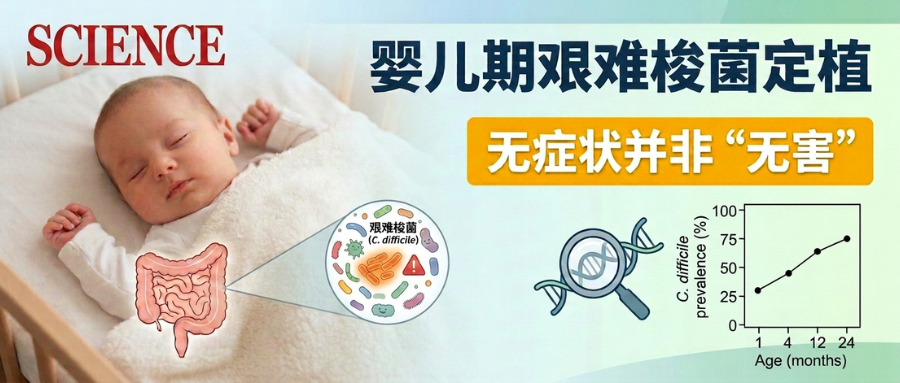
艰难梭菌(Clostridioides difficile)在成年人身上会引起严重的肠道感染,甚至致命性腹泻。但奇怪的是,它经常出现在婴儿的肠道里,孩子却看不出任何症状。
近日发表在《Science》的研究用新生小鼠做模型,发现艰难梭菌定植后,肠道上皮(覆盖肠道内壁的那层细胞)出现了明显的炎症反应和组织修复反应:与”损伤修复”相关的肠道干细胞群体明显增多,而干细胞的分化方向也被”带偏”了——更多地变成分泌型细胞(如产生黏液的细胞),而不是正常比例的吸收型细胞。
编辑
更关键的一点是:即使这些细菌只是短暂停留、后来被清除了,影响却留了下来。这些小鼠长到成年,肠道仍带着早期暴露的痕迹。
那么是什么造成的伤害?研究证明”元凶”是细菌产生的毒素:用不产毒的菌株去定植,幼鼠肠道安然无恙;而给母鼠接种一种针对艰难梭菌的mRNA-脂质纳米颗粒疫苗(技术原理与新冠mRNA疫苗同源),母体产生的抗体也能保护幼崽。
研究还把结论延伸到了人类:人类婴儿的肠道上皮细胞对这些毒素同样敏感;而从已定植婴儿身上取得的肠道活检样本,也显示出干细胞行为的异常改变。
这项研究的意义在于改写了一个临床惯例。目前儿科通常不对无症状婴儿的艰难梭菌做检测或治疗,因为”没症状就没问题”。但”没有腹泻”和”没有影响”是两回事——肠道上皮的重塑可能是无声的。
它也契合近年来“生命早期窗口期”的研究思路:生命最初几个月的微生物暴露,可能通过影响免疫训练和肠道屏障构建,在多年后才显现后果。
不过小编认为虽然研究的实验和设计非常创新和有范式意义,但是该谨慎还是谨慎,小鼠肠道发育与人类节奏差异比较大,人类那部分证据目前只是“关联性”的活检观察,尚不能证明婴儿期定植会导致具体的成年疾病(如炎症性肠病或过敏),长期随访的人群队列验证可能还是很有必要。
最有想象力的一环是母体疫苗策略。通过给孕产妇接种,让抗体经胎盘和母乳传递给婴儿——这条路径已在B族链球菌、RSV等病原体上被验证。如果艰难梭菌真被确认为早期发育的风险因素,这或许是最可行的干预方式。当然,从小鼠模型到临床应用,中间还有很长的路。
接下来一起共同学习和探讨下该研究。
既往研究显示,出生后两年内,40%~70%的婴儿存在艰难梭菌无症状定植。
一支来自美国费城的婴儿队列中,对健康婴儿粪便进行测序,得到几个关键流行病学事实:
1. 艰难梭菌定植率极高:
出生后第一个月内即有28.2% 的婴儿粪便检出艰难梭菌;到 2 岁时累计接近 75%。这一数字高于既往多数文献报告的 40%–70%。
编辑
doi: 10.1126/science.ady2886.
健康婴儿出生后前 24 个月粪便样本中艰难梭菌的检出率(A)与相对丰度(B)。样本量:1 月龄 n = 106,4 月龄 n = 139,12 月龄 n = 133,24 月龄 n = 87。相对丰度(B)以占总读数(reads)的百分比表示。上面 A、B 两图说明艰难梭菌在健康婴儿肠道中检出率高(通常 1–4 月龄达峰、随后随菌群成熟下降)。
从数字看,定植率随月龄快速攀升:出生一个月不到三成,两岁时接近四分之三。这条上升曲线本身就提示,定植更像是婴儿期微生物组装配过程中的一个常规事件,而非罕见的意外暴露。
2. 早期定植率与工业化程度相关:
以往关于婴儿艰难梭菌携带率的研究有一个明显偏差:采样人群绝大多数来自工业化社会。研究者因此做了一次跨地域的比较分析,按照联合国统计司的分类标准,把人群分为工业化、转型中、非工业化三类社会,比较其中婴儿的艰难梭菌携带情况。
编辑
采样国家分布图。颜色代表社会类型划分:工业化(红)、转型中(蓝)、非工业化(绿)、未采样(白)。饼图显示各类别的样本数量。
结果呈现出清晰的梯度:艰难梭菌在工业化社会的婴儿中,携带率和相对丰度都显著高于非工业化社会,而转型中社会处于两者之间的中间水平。
研究者对这一发现的解读相当克制,也相当有分量:这意味着本研究观察到的那些早期反应——上皮炎症、损伤修复型干细胞的富集、分化偏移——可能并不代表所有人群中”正常”的肠道发育过程,而只是暴露水平较高的人群中的特定状态。
由此他们提出一个假说:艰难梭菌的早期定植,或许是工业化塑造上皮-免疫发育轨迹、进而影响长期健康走向的一种新机制。
作者也坦率承认了数据的局限:他们的数据集本身存在测序偏差,工业化地区的样本占比过高。
为什么工业化会提高携带率?
文中没展开,但几条路径是可以推想的。剖宫产率高,婴儿错过了产道菌群的传递,肠道早期生态出现空位;配方奶喂养比例高,双歧杆菌等厌氧菌群建立得较慢,而这些菌通常能通过竞争和产酸抑制艰难梭菌;抗生素使用普遍,包括母亲产前预防性用药;医院分娩环境中艰难梭菌孢子的暴露机会更多;家庭环境更清洁,早期微生物暴露的多样性反而更低。这些因素在方向上是一致的——艰难梭菌是个机会主义者,它擅长填补生态真空。
它与”卫生假说”的关系值得注意,但也要小心。工业化国家过敏、自身免疫、炎症性肠病的高发,长期被归因于”微生物暴露不足”。这项研究提供了一个视角上的补充:问题也许不只是”接触的好菌太少“,还包括“接触了错误的菌”。文章提到的 ILC2、簇细胞减少,恰好落在过敏相关的 2 型免疫通路上——这个巧合让假说变得诱人。
3. 低丰度,高持留
值得注意的是 0.43% 这个丰度数字。它说明艰难梭菌在婴儿肠道里始终是“少数派”,从未占据主导。这留下了一个尚未区分的可能性:婴儿之所以无恙,究竟是因为上皮细胞对毒素有抵抗力,还是因为菌群把这种菌的数量压得足够低、毒素总量不足以致病?丰度数据本身回答不了这个问题——需要后续的小鼠实验来拆解。
但是这个属于典型的低丰度定植,长期以来,医学界因此把婴儿期的这种”定植”(细菌定居下来但不发病)当作无关紧要的现象,但是真的 “无危害”吗?
婴儿携带的是有毒素的致病菌
Science研究继续验证发现婴儿携带的是“真致病菌”:对 1 岁以内婴儿分离株的全基因组分析显示,这些菌株携带并表达毒素基因,且在系统发育上与从 2–18 岁儿童及 18 岁以上活动性感染患者体内分离的菌株聚在同一簇。换言之,婴儿肠道里的艰难梭菌并非“无害的特殊婴儿型”,而与真正致病的菌株没有本质界限。
婴儿、儿童与成人来源艰难梭菌菌株的基因组多样性
编辑
doi: 10.1126/science.ady2886.
这张图要回答什么问题?
正文里有一个绕不开的质疑:婴儿携带艰难梭菌却不发病,是不是因为他们运气好,碰上的都是“温和无毒”的菌株?如果答案是肯定的,整篇论文的立论就不成立了——那就只是细菌的差异,跟宿主没关系。
作者把 725 株细菌的基因组放在一起排系谱,看婴儿株会不会自成一族。
如果婴儿菌株真的特殊,图上应该出现明显的分层——婴儿株聚在某几个分支里,成人致病株聚在另外的分支里,泾渭分明。
实际结果是相反的:婴儿株散落在整棵树中,与来自活动性感染患者的儿童株、成人株交错分布,尤其集中在 Clade 1 这个占了 387 株(超过半数)的大家族里。加上 87.2% 的整体产毒比例,结论很直白——婴儿肠道里的艰难梭菌,也是能让成年人住进医院的那种艰难梭菌。
菌群研究长期偏向”丰度决定影响力”的直觉,但艰难梭菌的作用机制是分泌毒素——毒素是可以扩散、可以放大的。少量有毒菌照样能对邻近的上皮细胞造成持续的局部刺激。
以前两个旧假说的动摇留下了一个真正的空白。既然不是”受体没长好”,也不是”母乳里的抗体挡住了”,那婴儿为什么不腹泻?
这项研究给出的答案思路很有意思:也许婴儿并不是”没受影响”,而是受到的影响以另一种形式表现出来——不是急性腹泻,而是肠道上皮和干细胞层面的静默重塑。
为系统阐明生命早期艰难梭菌暴露对宿主的影响,研究建立了可重现人类婴儿无症状定植特征的新生小鼠模型(下图)。无需对母鼠或幼鼠进行抗生素预处理,艰难梭菌即可在新生小鼠体内定植,菌载量与既往成年小鼠感染模型相当。即使经口接种相当于成年小鼠致死剂量100倍的艰难梭菌VPI 10463菌株,新生小鼠仍未出现疾病或死亡(下图)。
编辑
doi: 10.1126/science.ady2886.
新生期内菌载量与毒素滴度保持稳定,断奶后降至检测限以下(下图)。此外,新生期的艰难梭菌定植并未显著影响早期菌群的演替进程或组成。
编辑
doi: 10.1126/science.ady2886.
艰难梭菌分泌两种外毒素——毒素 A(TcdA)与毒素 B(TcdB),二者是成年个体病理损伤的驱动因素。尽管新生小鼠在定植期间对疾病症状表现出强大抵抗力,但全身性给予重组毒素 B(rTcdB)会在 24 小时内导致 100% 死亡,提示这种保护是由局部机制而非全身机制赋予的。
编辑
doi: 10.1126/science.ady2886.
Tips
这个模型的关键设计优势
成年小鼠要被艰难梭菌感染,必须先用抗生素把原有菌群”清场”——否则健康菌群会把入侵者挡在门外。这带来一个长期困扰该领域的麻烦:你无法区分某个现象是感染本身造成的,还是抗生素破坏菌群造成的。
新生小鼠不需要这道手续。它们的菌群尚未成熟,本身就”门户敞开”。作者因此获得了一个干净的对照体系:菌群未被人为破坏,观察到的一切都可归因于细菌本身。这正是他们质疑此前 γδ T 细胞结论的立足点——那个模型用了广谱抗生素,而抗生素本身就会重塑免疫环境。
剂量对比揭示的保护强度
成年鼠需先破坏菌群、再用 1000 个孢子即可致死;新生鼠接受 100 倍剂量却毫发无损。这不是”轻微耐受”,而是量级上的差异——提示存在某种主动的保护机制,而非仅仅是暴露不足。
一个非常好的排除实验
如果新生鼠只是”毒素打不动”(比如受体不表达、细胞不敏感),那给它们注射纯化毒素也应该没事。结果恰恰相反:全身注射 rTcdB,24 小时内全部死亡。
这个结果的信息量很大。它说明新生鼠的细胞对毒素完全敏感、甚至更脆弱。保护不是”抗毒素”,而是“防毒素抵达”——某种发生在肠腔与上皮界面的局部限制,让毒素无法穿透屏障进入体循环。研究焦点由此被锁定在肠道局部。
近期研究表明,产生白介素-17(IL-17)的γδ T细胞是新生个体免于艰难梭菌相关死亡的关键介导者。但该模型采用广谱抗生素促进定植,因此γδ T细胞在无抗生素条件下是否具有同样的保护作用尚不明确。
研究发现,缺乏B细胞和T细胞(包括γδ T细胞)的RAG-1基因敲除新生鼠定植后仍受到保护,提示本模型中存在其他新生期保护机制。
编辑
doi: 10.1126/science.ady2886.
新生鼠艰难梭菌定植不引发中性粒细胞应答
在成年个体中,血液中性粒细胞计数及其向大肠的浸润是疾病严重程度的主要相关指标。因此作者推测,新生鼠在定植后中性粒细胞募集可能是受抑的。结果显示,新生鼠对艰难梭菌既无血液中性粒细胞扩增,也无向大肠的浸润,与成年鼠形成鲜明对比(下图)。
编辑
doi: 10.1126/science.ady2886.
而药物性减少感染期成年小鼠肠道中性粒细胞募集可显著降低疾病严重程度。综合来看,这些数据提示中性粒细胞扩增与募集的缺失参与了新生个体免于症状性疾病的保护,但其潜在机制很可能是多方面的。
免疫不成熟通过限制中性粒细胞炎症发挥保护
RAG-1 敲除鼠完全没有 T 细胞和 B 细胞,却照样活得好好的。这直接否定了”适应性免疫(含 γδ T 细胞)是必要条件”的说法——至少在无抗生素模型里如此。作者措辞很谨慎(”还有其他机制参与”),没有全盘否定既往工作,但实质上是把解释权收了回来。
中性粒细胞这条线则更接近答案。成人重症艰难梭菌感染的一个残酷真相是:杀死患者的很大程度上是自身的炎症反应——中性粒细胞大量涌入肠壁,在清除细菌的同时把组织一起破坏了。药理学抑制中性粒细胞募集反而能减轻成年小鼠病情,正是这一逻辑的直接证据。
新生鼠的免疫系统尚未具备发动这种猛烈募集的能力。于是出现了一个耐人寻味的转折:新生个体的”免疫不成熟”在这里不是缺陷,而是保护。没有过度反应,就没有自伤性损伤。
尽管未见明显的组织病理损伤,但是发现定植艰难梭菌的新生小鼠粪便中脂质运载蛋白-2 水平升高,提示炎症反应已被激活(图 F)。此外,从感染新生鼠中分离的肠道上皮细胞(IEC)表现出活力下降及剪切型 caspase-3 表达增加,说明存在炎症与病理损伤之间的脱耦联(图 G )。
编辑
doi: 10.1126/science.ady2886.
编辑
doi: 10.1126/science.ady2886.
原文描述的很清楚,炎症在发生(脂质运载蛋白-2 升高、干扰素与 NF-κB 通路激活);细胞在死亡(活力下降、caspase-3 剪切);但组织完好无损(无病理评分升高、无中性粒细胞浸润、幼鼠活蹦乱跳)。
在成年个体里这三者是绑在一起的——炎症导致细胞死亡,细胞死亡导致屏障崩塌,屏障崩塌导致重症。新生个体把这条链在最后一环切断了。
断链的机制在哪:增殖
答案藏在 STAT3 与 Ki67 里。IL-6/JAK/STAT3 通路在肠道中是经典的再生轴——它既是炎症信号,也是驱动干细胞增殖修复的信号。Il22 上调同样指向这一方向(IL-22 是促上皮修复的关键细胞因子)。再加上 G2M 检查点、E2F 靶基因(细胞周期驱动因子)、MTORC1(合成代谢与生长),以及 Ki67 阳性细胞集中在腺体基部(干细胞与祖细胞所在位置)。
进一步推测新生肠道并非避免了细胞死亡,而是用更快的补充速度追上了损失速度。可以理解为一场竞速:毒素在顶端杀死细胞,干细胞在基部加速生产新细胞。只要生产不落后于损耗,屏障就始终连续,毒素就进不了体循环。这与上一节”全身注射毒素 24 小时内 100% 死亡”证据吻合——细胞对毒素毫无抵抗力,保护全靠屏障维持。
72 个基因”这个数字值得琢磨:72 个 DEG,对于一场能杀死成年动物的感染而言,是相当克制的转录响应。而且 67:5 的上调比压倒性偏向”启动防御”,而非”关闭功能”。
上调基因分两组,各有含义。Reg3g、Ltf(乳铁蛋白)、Slpi、Lcn2 属于抗菌肽与营养限制类——上皮自己动手压制细菌,靠夺取铁等资源而非召唤免疫细胞。而 Cxcl5 是中性粒细胞趋化因子,Ly6g 更是中性粒细胞的标志分子。这里出现一个耐人寻味的矛盾:招募信号发出去了,但中性粒细胞没来(上一节已证实)。这提示阻断点不在上皮的”呼叫”环节,而在下游的响应端——新生个体的骨髓储备不足、或中性粒细胞本身迁移能力尚未成熟。上皮在号召,只是没细胞应答。而这恰恰救了幼鼠一命。
下调的细胞骨架基因
Arhgap20、Cyria 都参与 Rho GTPase 与肌动蛋白动态调控。这不是巧合——TcdA/TcdB 的分子作用机制正是糖基化失活 Rho 家族 GTPase,导致肌动蛋白骨架解体、细胞连接丧失。骨架相关基因的转录改变,是毒素在新生上皮内确实发挥了作用的分子指纹。毒素起效了,只是后果被增殖代偿掉了。
研究团队将新生上皮特异性的转录应答与既往发表的成年小鼠艰难梭菌感染期全结肠基因特征进行了比较分析。
编辑
doi: 10.1126/science.ady2886.
结果发现,新生期 DEG 与成年急性感染时间点(AD3–AD5)的 DEG 高度交叠,而在恢复期(AD8、AD10)相关性下降。此外,GSEA 显示新生鼠呈现出与感染成年小鼠相似的通路应答。
这个结果的含义相当反直觉:新生上皮的分子状态,等同于重症成年个体的急性期状态。它们并没有”温和地”应对细菌——从转录组看,它们身处一场急性感染的正中央。区别只在结局:成年个体从这个状态走向组织破坏与死亡,新生个体停在这里,然后靠增殖把损伤填平。
于是全篇的论点收束为一句:决定生死的不是有无炎症,而是上皮能否跟上修复的节奏。
上皮细胞在”备战”,也在”抢修”
基因集富集分析(GSEA)显示,被定植幼鼠的肠道上皮出现了多条炎症通路的激活痕迹:干扰素-γ 和干扰素-α 信号特征、TNF-α 经 NF-κB 的信号通路,以及IL-6/JAK/STAT3 通路的活化。
其中 STAT3 这条线值得单独说。研究者检测到磷酸化 STAT3 水平升高,同时 Il22 表达增加——这两个信号组合起来,是上皮再生反应正在进行的经典标志。与此呼应,GSEA 还富集到了损伤应答、细胞周期和增殖相关的通路:G2M 检查点、E2F 靶基因、MTORC1 信号。最后用 Ki67 染色直接验证了这一点:被定植幼鼠的肠腺基底部(crypt base)增殖活性明显增强。
所以画面是这样的:上皮细胞一边释放炎症和抗菌信号,一边加速分裂修补自己。表面风平浪静,底下工地开工。
新生鼠无症状定植掩盖急性感染样分子反应
研究者随后把幼鼠上皮的转录反应,与已发表的成年小鼠艰难梭菌感染时的全结肠基因特征做了比对。结果颇具冲击力:幼鼠的差异表达基因与成年鼠急性感染期(第 3–5 天)的基因高度重叠;而随着成年鼠进入恢复期(第 8–10 天),这种相关性就下降了。通路层面的分析也得出同样结论——幼鼠的反应模式,近似于一只正在生病的成年鼠。
这是个很有说服力的论证。它说明幼鼠的”无症状”只存在于宏观层面:在分子层面,它们的肠道正在经历一场急性感染。
关键发现:干细胞被推向了”损伤模式”
既然增殖和再生信号如此突出,研究者转向直接检验肠道干细胞(ISC)的功能。他们在出生后第 14 天分离幼鼠的肠道干细胞,培养成结肠类器官(organoid)——这是评估干细胞功能和再生潜力的标准手段。
来自被定植幼鼠的干细胞表现出:
•更高的类器官形成效率(OFE)
•更高的偏心率(即形状更不规则,圆度下降)
•更多的芽状突起(budding)
这些形态特征通常意味着再生潜力和分化活动都被增强了。
更精确的机制来自两类干细胞的区分。
LGR5⁺ 干细胞负责肠道上皮的日常更新,是”常规维护工”;SCA-1⁺ 干细胞(表达 Ly6a)则专门负责损伤后的修复,是”应急抢修队”。
数据非常清晰:Ly6a 是被定植幼鼠上皮中上调最显著的基因之一,而 Lgr5 表达没有变化。流式细胞术进一步确认了 SCA-1⁺ 干细胞的富集。
换句话说,幼鼠的肠道并没有停止日常运转,而是额外启动了应急修复系统——身体判定这里发生了损伤。
新生期定植艰难梭菌重塑干细胞并留下持久记忆
除干细胞身份外,分化去向也被重塑。分泌型标志普遍上调:Dclk1(簇/tuft cell)、Muc2(杯状细胞)、Chga(肠内分泌细胞);而吸收型结肠细胞标志Apob无明显变化。荧光显微镜亦证实MUC2⁺杯状细胞增多。
更关键的是,这些改变持久存在:新生期定植、断奶后细菌已清除的小鼠,至8周龄成年仍较对照呈现杯状细胞(MUC2⁺)扩增,且DCLK1⁺簇细胞减少。
编辑
doi: 10.1126/science.ady2886.
编辑
doi: 10.1126/science.ady2886.
体外结果进一步支持细胞“记忆”:离体传代10次后,这些干细胞仍保留增强的增殖潜能与特殊类器官形态;Muc2和Chga表达仍有升高趋势,Ly6a持续高表达,而Lgr5下调。由于此时细胞已脱离细菌、毒素与免疫信号,“记得”的改变更可能是细胞内在(cell-intrinsic)的表观遗传重塑,而非依赖持续外界刺激。
编辑
doi: 10.1126/science.ady2886.
最后,体内谱系追踪表明杯状细胞增多由经典LGR5⁺干细胞分化路径驱动。综上,作者认为艰难梭菌在幼鼠上皮诱导两条并行反应:损伤修复型干细胞的出现以促进再生,以及LGR5⁺干细胞分化程序的重编程。
留下的印记有什么后果?
杯状细胞可以充当某些肠道病毒的复制场所——包括小鼠星状病毒。研究者据此做了一个功能性验证:新生期被定植过的成年小鼠,在感染病毒 12 天后,粪便中的病毒载量高于对照组。
也就是说,早年的细菌暴露改变了肠道的细胞构成,而这种构成上的偏移,在成年后转化为对另一种病原体的易感性升高。
作者也坦诚地报告了阴性结果:新生期的预定植对成年后的艰难梭菌感染既没有保护作用,也没有加重病情——体重下降和上皮损伤都没有差异。
此外,成年期感染会导致类器官形成能力下降,无论此前是否被定植过。这与已有研究一致:成年期的艰难梭菌感染会损伤肠道干细胞、削弱上皮恢复能力。
关于那个”传代 10 次”的实验,值得强调它在逻辑上解决了什么问题。观察到成年小鼠仍有细胞组成异常,其实有多种解释:可能是持续的低水平炎症在维持,可能是菌群结构被永久改变了,也可能是免疫记忆在起作用。而离体类器官实验把所有这些外部因素都剥离了——细胞在培养皿里传了十代,环境完全人工,改变依然存在。剩下的解释就只有一个:干细胞自身可能被改写了。
不过这里有个作者也未回避的软点:Muc2 和 Chga 在传代后只是”呈现升高趋势”,也就是没有达到统计学显著。这说明细胞内在记忆的证据在形态和生长层面很强,在具体分化基因层面则相对弱一些。真正的机制层面还缺一块拼图——如果是表观遗传,那么是 DNA 甲基化、组蛋白修饰,还是染色质可及性的变化?这需要 ATAC-seq 或甲基化测序来回答,是后续研究的明显方向。
编辑
doi: 10.1126/science.ady2886.
免疫细胞也留下了长期痕迹
由于肠道上皮与免疫系统存在密切的双向对话,研究者进一步评估免疫层面的变化。他们对新生期定植后小鼠在4周龄与8周龄的结肠固有层免疫细胞做免疫分型,发现两类先天淋巴细胞显著减少:GATA3⁺的2型先天淋巴细胞(ILC2)和RORγt⁺的3型先天淋巴细胞(ILC3)。
值得注意的是其“选择性”:辅助性T细胞亚群无变化,髓系细胞群亦不变。研究者还排除了一个直观的替代解释——这些长期免疫改变并非由持续的菌群失调所致;作者虽然谨慎指出,早期短暂的菌群组成或功能波动仍可能部分参与。
关键的机制实验:是毒素,不是定植本身
这是全文逻辑上最严密的一部分。研究者要回答一个二选一的问题:上皮的这些改变,究竟是毒素造成的,还是仅仅”有细菌住进来”就够了?
他们用了四组互相印证的实验:
•第一:体外直接给新生小鼠的肠道上皮细胞加入重组毒素 B——细胞存活率显著下降。毒素本身足以造成损伤。
•第二:用从健康人类婴儿体内分离出的产毒株和不产毒株分别定植幼鼠。两株菌的定植量相当,产毒株那组粪便中也检出了相应水平的毒素,且幼鼠都没有发病。但差异出现在细胞层面:产毒株组的上皮细胞存活率下降、Lcn2、Reg3g、Slpi 等基因上调;不产毒株组则完全没有这些变化。产毒株组的干细胞也表现出类器官形成效率、偏心率、芽状突起的增加。
编辑
doi: 10.1126/science.ady2886.
•第三,也是最干净的一组:用野生型 R20291 菌株与其同源的 ΔtcdA ΔtcdB 双敲除突变体做对比。这两株菌在遗传背景上几乎完全一致,唯一的区别就是能不能产毒素。结果只有野生型引发了那些表型。
•第四,长期效应也同样依赖毒素:离体传代 10 次后仍保留的类器官表型,成年后持续存在的杯状细胞和肠内分泌细胞增生,以及先天淋巴细胞的减少——全部只出现在产毒菌株定植的小鼠身上。
结论因此非常明确:新生期上皮的这些反应,源于毒素对肠道干细胞的作用,而不是细菌定植本身。
母体接种疫苗,能保护下一代
既然母体可通过脐带血和母乳将抗艰难梭菌抗体传给后代,研究者便用此思路设计了多价 mRNA-脂质纳米颗粒疫苗来实现母体免疫。
编辑
doi: 10.1126/science.ady2886.
接种母鼠后,幼鼠胃内容物与粪便中可检测到抗 TcdA、抗 TcdB 的 IgG 与 IgA;但抗体并未降低肠道菌载量。相应地,幼鼠粪便毒素滴度下降、上皮细胞存活率提高,Ki67 显示的过度增殖被减弱。更关键的是,幼鼠干细胞长出的类器官与未被定植对照几乎一致,过度增殖与异常分化均被逆转;且保护可持续,母鼠后续新生窝崽同样受益。
值得一提的是,疫苗并未清除细菌,只是中和毒素——而这已经足以保护发育中的肠道。该结果也与前述机制结论相互印证:若毒素是元凶,中和毒素就足够了。
在人类身上的验证
最后研究者转向人类样本。首先,被定植的人类婴儿粪便中脂钙蛋白水平升高,与小鼠模型一致。
随后他们获取了5 名婴儿患者的结肠活检样本,并配对粪便样本以确定定植状态。结果:
其中一名被定植婴儿的活检 RNA 显示 Ly6a、Muc2、Chga 升高,而Lgr5、Dclk1、Apob 无变化——与小鼠模型的模式高度吻合;
人类婴儿的肠道上皮细胞在毒素处理下出现剂量依赖性的细胞死亡和屏障功能下降;
来自两名被定植婴儿的类器官,在多次传代中都表现出增殖和分化增强,Ly6a、Muc2、Chga表达升高。
编辑
doi: 10.1126/science.ady2886.
作者由此提出:艰难梭菌毒素对人类婴儿肠道干细胞有直接作用,这挑战了”婴儿肠道上皮天生对艰难梭菌毒素有抵抗力”这一长期假设。但他们也明确写道:样本量有限,需要未来研究进一步验证。
特别注意
先说这项研究最强的一环。ΔtcdA ΔtcdB 同源突变体那个实验是分子微生物学中的“金标准”设计——两株菌除了毒素基因外基因组完全相同,因此任何表型差异都只能归因于毒素。加上体外重组毒素实验(充分性)和不产毒临床株实验(必要性),这些结果为毒素介导肠道损伤的因果作用提供了较为有力的实验支持。
母体疫苗的部分在概念上很优雅,尤其是”不清菌、只中和毒素”这一点。它暗示了一种温和的干预哲学:不必扰动婴儿正在建立的菌群生态,只需要拦掉那个有害的分子。这比用抗生素清除细菌要合理得多——后者可能造成比艰难梭菌本身更大的发育扰动。
其最容易被过度解读的地方。5 例活检,其中用于基因表达比较的实际上是 1 例定植 vs 1 例未定植;类器官来自 2 例。这个规模无法做任何统计学推断——它是病例观察,不是队列证据。个体间的肠道基因表达差异本身就极大,受年龄、饮食、用药、活检部位、就诊原因等无数因素影响。而且这些婴儿是”患者”,本来就因为某种疾病在接受结肠活检,这本身就是一层混杂因素。
所以这部分数据的正确定位是:它证明了”人类婴儿的细胞对毒素敏感”(这部分有体外剂量反应曲线支持,比较可靠),并提供了”人体内也可能发生类似改变”的初步线索(这部分只是提示)。 它不能证明人类婴儿被定植后真的会发生持久的干细胞重编程。作者在结论中保留了这一点,比较谨慎。
关于 ILC2 和 ILC3 的减少,这条线索的潜在意义可能比文中着墨的分量更重。ILC3 参与维持肠道屏障和抗菌肽分泌,与炎症性肠病风险相关;ILC2则参与 2 型免疫,与过敏和哮喘有关。有趣的是,ILC2 的减少与前面提到的簇细胞减少在生物学上是一致的——簇细胞和 ILC2 之间存在一个正反馈回路(簇细胞分泌 IL-25 激活 ILC2)。
两个环节同步下降,说明整条 2 型免疫轴在发育中被压低了。这为”早期定植是否影响成年后过敏性疾病”提供了一个具体的机制假设,但要强调这仍然只是假设——文中并未测试这些小鼠的过敏或炎症表型。
小编想先指出文章讨论里最值得称赞的一句话,也是最容易被忽略的一句:”或者反而以某种方式对宿主发育有益”(or alternatively shape host development in beneficial ways)。
这句话把研究立意和读者从”揭露威胁”拉回到了“提出问题”。仔细想,它有充分的理由存在。杯状细胞增多意味着黏液层加厚、屏障更强;损伤修复型干细胞的富集意味着组织具备了更强的应变能力;轻度的炎症暴露在免疫训练中往往是必需的,而不是有害的。
生命早期的免疫系统需要”练兵”,一个不产生疾病、但确实引发反应的刺激,理论上完全可能是一次有益的训练。研究者观察到的所有现象,在生物学上都可以被读成“损伤”,也可以被读成“适应”。
目前的数据无法区分这两种解读——它只证明了变化是真实的,没有证明变化是坏的。唯一那个偏向”坏”的证据是星状病毒载量升高,而这是单一实验、单一病毒、单一指标。
正因如此,最后关于临床实践的那段话需要谨慎对待。“重新评估把婴儿携带视为良性的惯例”这句话,作者措辞其实非常克制——说的是“重新评估”,不是“应当治疗”。但这类句子在传播中容易变成”婴儿携带艰难梭菌需要治疗”,就偏离了原文——论文讨论的是预防毒素损伤,而非清除定植本身。
理由很直接:目前没有证据表明清除定植能给无症状婴儿带来净收益,而清除的代价是明确的。抗生素处理一个无症状状态,必然扰动正在建立的菌群——而论文自己的数据显示,艰难梭菌定植本身并未显著改变早期菌群的演替。也就是说,很可能是治疗的扰动大于细菌的扰动。更何况到 2 岁累计有约 75% 的婴儿被定植,这意味着任何以清除为目标的方案都会变成一场针对大多数婴儿的干预,微小副作用也会被放大为公共卫生问题。
值得注意的是,这篇论文选择的路径并不是清除——母体疫苗针对毒素,细菌仍留在肠道里。
不杀菌、不扰动生态,只中和那个有害分子。如果这条路走得通,它在成本-收益结构上远优于抗生素干预。但同样要说清楚,那还只是小鼠数据。
最后,小编还是想把这项研究放在一个更长的脉络里看。过去二十年,”发育起源假说”(DOHaD)的核心洞见是:许多成年期疾病的根源可以追溯到生命最初的窗口期。而微生物组研究给这个假说提供了一个具体的作用机制。这项研究的真正贡献,或许不在于它对艰难梭菌下了什么判决——它其实没有下判决——而在于它示范了一种研究范式:当判断一个早期微生物是否”有害”时,不能只看它是否引起症状,而要看它是否改变了发育本身。
按这个标准重新审视婴儿肠道里的其他“沉默住客”,恐怕不止艰难梭菌一个需要重新体检。这大概是这篇论文留下的最有价值的问题。
总而言之,这项工作把艰难梭菌从”成年病人的致病菌、婴儿肠道的无害过客”重新定义为一个被低估的早期生命病原体:它在婴儿不发热、不腹泻的平静表象下,悄然改写肠道干细胞的分化程序和黏膜免疫的发育轨迹,并把痕迹留到成年。对于临床,这提示重新审视婴儿期艰难梭菌检测与管理的边界;对于公卫,这为理解工业化与免疫代谢疾病的关联投下了一道新的光。
谷禾健康
一个炎症性肠病(IBD)患者,刚确诊时,医生告诉他要注意饮食,于是他可能会经历这样一个过程:
先是开始少吃辛辣、油炸食品。
后来听说乳制品可能刺激肠道,于是戒掉牛奶。又看到有人说麸质不好,面包也不吃了。
再后来是粗粮、豆类、生冷蔬菜、水果、坚果
……
每一次腹痛、腹胀或者腹泻,都可能让一种新的食物进入“黑名单”。
编辑
这种现象并不罕见。2018 年一项针对 294 名荷兰成年 IBD 患者的调查显示:
编辑
这类数据并不能代表所有 IBD 患者,但足以说明:对许多人来说,饮食是疾病管理中最容易主动掌控的一部分。
问题也由此出现:如果某种限制能让人感觉好一点,那么限制得更多、更彻底,会不会更安全?如果症状减少了,是不是说明肠道炎症也控制住了?
科学界正在重新审视这个逻辑。
本文系统梳理了特定碳水化合物饮食(SCD)、低FODMAP、无麸质、无乳制品…这些限制性饮食常被用于应对不同的健康困扰,但它们带来的匹配获益,是否足以抵偿长期坚持所付出的营养、微生态、心理和现实成本?
本文不预设限制性饮食应当被推崇或否定,而是尝试追问:对谁有益、依据有多充分,又要付出什么代价?当明确依据有限时,我们应如何判断一种饮食限制是否值得长期坚持?
编辑
限制性饮食之所以有吸引力,很大程度上来自一个符合直觉的推理:既然某些食物可能带来症状,把它们排除以后感觉舒服了一些,那么意味着排除得更加彻底,也许效果会更好。
特定碳水化合物饮食(specific carbohydrate diet,SCD)是一个典型例子。
特定碳水化合物饮食 vs. 地中海饮食——限制更多的一方,没有明显优势
特定碳水化合物饮食(specific carbohydrate diet,SCD)是 IBD 患者中较常见的限制性饮食之一。通常限制谷物、复杂碳水化合物、多数乳制品和加工食品。
早期一些病例和观察性研究报告过症状改善,但样本量、随访时间和对照质量都有限。
编辑
2021 年,发表于《Gastroenterology》的一项DINE-CD 的多中心随机对照试验,给了研究者一个很直接的比较机会:SCD与地中海饮食,谁对轻中度症状的成年克罗恩病患者更有帮助?
研究纳入有轻中度症状的成年克罗恩病患者,194 人被随机分配到 SCD 或地中海饮食组,191 人进入有效性分析。前6 周由研究方提供符合方案的餐食和零食,之后患者自行执行饮食。
第 6 周,两组差异没有统计学意义。结果如下:
编辑
也就是说,在这组轻中度症状的成年人中,限制明显更多的SCD,并没有因为“管得更严”而获得更好的症状缓解或炎症指标应答。
无麸质、无乳制品——有适应证时有价值,长期坚持缺少依据
无麸质和无乳制品饮食也需要区分适应证。
如果 IBD 患者同时存在乳糜泻——严格无麸质饮食当然是必要治疗;
如果明确有乳糖不耐受——减少乳糖摄入也可能明显改善腹胀、腹泻等症状。
到了没有这些适应证的IBD患者身上,证据就弱得多。
目前没有高质量随机对照试验证明,没有乳糜泻的IBD患者通过长期戒除麸质可以改善炎症结局。无麸质饮食还可能降低膳食纤维、叶酸、维生素B12、维生素D、铁和钙等营养素的摄入,同时增加饮食成本。
乳制品也有类似情况
两项规模较小的UC维持期研究共纳入77名患者,12个月时,无奶饮食组临床复发率为59%,对照组为68%,RR=0.83,95%CI 0.60~1.15,差异没有达到统计学显著;内镜和组织学复发的数据也不足以支持明确结论。
与此同时,长期排除乳制品还需要考虑钙和维生素D不足。
因此,对于长期忌口的患者,可以定期问问自己:这项限制当初为什么开始,今天还需要吗?
当严格程度增加,却没有获得与之相匹配的疾病获益,长期越来越窄的饮食范围,会不会同时付出其他代价?
编辑
限制性饮食当然有它的临床位置。疾病活动期、存在梗阻风险、明确食物不耐受,饮食调整本身可以是治疗和症状管理的一部分。
需要权衡的是,当一种长期限制没有显示出与其严格程度相匹配的疾病获益时,那么营养、心理、微生态、成本和可执行性代价就应被重视。
营养代价 | 过度忌口,加重营养风险
IBD 患者本身就容易出现营养问题。慢性炎症、食欲下降、腹泻和吸收障碍,都可能影响营养摄入和吸收,药物及既往手术也可能增加这一风险。
如果此时又长期排除多个食物类别,问题就容易叠加。长期忌口、食物种类不断减少,则可能进一步造成能量和蛋白质摄入不足,铁、维生素 B12、叶酸、维生素 D、锌和钙等营养素缺乏的风险增加。
看似正常的体重,也可能出现营养问题
即使体重没有明显下降,患者仍可能出现肌肉量减少,甚至发展为肌少症。研究指出,IBD 患者的肌少症与住院、术后并发症、生物制剂治疗反应较差及生活质量下降有关。
编辑
对于儿童和青少年,具有更高的营养需求,营养不足还可能影响生长发育、青春期发育延迟、骨矿化不足等。
因此,饮食管理里不是说只盯着“这顿饭有没有让我拉肚子”,也要看长期能量、蛋白质和微量营养素有没有跟上。
AGA 2024年临床实践更新提出,IBD患者需要定期接受营养不良筛查,并关注维生素D和铁;对于广泛回肠病变或既往回肠手术患者,还应特别关注维生素B12。
微生态代价 | 过度忌口,可能改变肠道菌群
长期限制还有一个容易被忽视的矛盾:很多人减少食物种类,是为了保护肠道,但肠道微生物同样依赖我们每天吃进去的食物。全谷物、豆类、蔬菜、水果中的多种膳食纤维和可发酵成分,可被肠道微生物利用,并生成包括乙酸、丙酸、丁酸在内的短链脂肪酸。丁酸被认为参与肠上皮屏障完整性和免疫调节。
研究指出,饮食多样性与肠道微生物群的多样性和韧性有关;长期减少可发酵纤维,可能伴随部分有益菌减少和短链脂肪酸生成下降。
因此,食物越来越单一带来的变化,可能不只表现为少摄入了几种维生素。长期饮食结构怎样改变肠道生态,也逐渐成为IBD营养研究的重要方向。
心理代价 | 焦虑:从谨慎进食到害怕吃饭
当食物不断被分成安全和危险,正常进食很容易变成持续的风险评估。
今天腹痛,就开始回想中午是不是吃错了什么;
明天排便次数增加,又从菜单里删掉一样。
随着这种模式不断重复,可选择的食物越来越少,
即使疾病已经稳定,患者也可能仍然不敢尝试过去停掉的食物。
这种模式在部分患者中会发展为明显的食物焦虑,甚至达到回避/限制性食物摄入障碍(avoidant/restrictive food intake disorder,ARFID)的标准。
注:回避/限制性食物摄入障碍是一种进食障碍。患者可能因为害怕进食后的不良反应、对食物的气味或质地敏感,或者缺乏进食兴趣,长期回避某些食物或限制摄入量,进而出现营养不足、体重下降或社交功能受损。与神经性厌食症不同,ARFID 通常与追求瘦身或对体重、体形的不满无关。
2025 年一项多中心研究纳入 325 名 IBD 患者,17.8% 符合 ARFID 标准;
即便只看没有客观活动性炎症的患者,仍有 16.3% 符合标准。
对于这部分疾病处于非活动状态的患者,胃肠道相关焦虑是显著预测因素。
一项包括国内四家三甲医院的消化内科门诊进行的横断面研究,共有 483 名患有炎症性肠病的患者完成了问卷调查。其中,20.3%的患者符合急性回避障碍的临床标准。急性回避障碍的平均得分为 21.9 分。
编辑
多变量逻辑回归分析结果显示,以下因素与急性回避障碍的发生有显著关联:患有克罗恩病的患者(比值比为 0.483,95%置信区间:0.280-0.835;p=0.009);处于活动性疾病状态的患者(比值比为 0.220,95%置信区间:0.123-0.392;p<0.001);具有与症状控制相关的饮食观念的患者(比值比为 2.431,95%置信区间:1.299-4.548;p=0.005);以及有特定饮食史的患者(比值比为 27.158,95%置信区间:3.679-200.456;p=0.001)。
回避/限制性食物摄入障碍(ARFID)不是以减重为目的的节食
患者可能因为害怕腹痛、腹泻等进食后果,对食物气味或质地敏感,或者逐渐缺乏进食兴趣,持续回避食物或限制摄入,最后影响营养、体重和社会功能。
当限制不断扩大、即使病情稳定也不敢重新引入食物时,饮食管理已经不仅是营养问题,也可能成为心理和生活质量问题。
执行代价 | 方案越复杂,现实中的坚持越困难
严格饮食还会带来很实际的负担:购买特殊食材、阅读配料表、自己准备餐食、减少外食、额外使用营养补充剂,以及更多的时间和经济成本。
临床试验中的退出率,可以部分反映这种负担。
提供预制餐 V.S. 自行备餐
提供预制餐:2026年一项对62项IBD饮食试验、共3523名参与者进行的Meta研究显示,总体未完成率约为16%。
自行备餐:其中最显著的例子是 PRODUCE 试验,在该试验中,特定碳水化合物饮食组44%的参与者退出。
编辑
研究者还注意到,由研究团队直接提供餐食的试验,完成情况往往好于需要参与者自行采购和准备食物的试验。换句话说,进入真实生活以后,复杂饮食的执行难度可能还会进一步增加。
当这些问题被放到一起,IBD长期饮食管理的方向也开始发生变化。
编辑
如果长期饮食限制既没有稳定显示出更好的疾病控制,又可能伴随营养、微生态、心理和执行方面的成本,那么研究自然会开始寻找另一种路径:在疾病条件允许的情况下,尽量保留更完整、更丰富、更容易长期维持的饮食结构。
近年来被讨论较多的地中海饮食,就是这种思路的代表之一。
地中海饮食:一种更丰富的长期饮食框架
地中海饮食强调摄入蔬菜、水果、全谷物、豆类、坚果、橄榄油、鱼类及其他优质蛋白,同时减少红肉、加工肉类和超加工食品。
这种饮食模式的特点不在某一种超级食物,而在整体组合:包含较丰富的膳食纤维、不饱和脂肪酸及植物来源的生物活性成分,也为肠道微生物提供了多种可利用的膳食底物。
编辑
在针对 IBD 研究过的包容性饮食模式中,当前各学会推荐地中海饮食作为大多数患者优选的饮食框架。
不过,支持性证据主要来自观察性研究,而随机对照试验数据仍然有限。
一些研究已经证明,坚持地中海饮食与克罗恩病和溃疡性结肠炎患者的疾病活动指数、炎症生物标志物和生活质量改善之间存在关联。
前文介绍的 DINE-CD 试验,也为这一方向提供了参考。在具有轻中度症状的成年克罗恩病患者中,地中海饮食与限制更严格的 SCD 在第6周取得了相近的症状缓解率,两组的炎症指标应答率也未见显著差异。
这项研究提示,长期饮食方案的选择可以同时考虑营养结构、食物丰富程度及患者的执行能力。对于病情稳定、没有特殊饮食禁忌的患者,地中海饮食提供了一种较容易融入日常生活的基础框架。
相关研究为包容性饮食提供了生物学依据,长期疾病获益仍有待更多临床试验进一步明确。
专业指南更加重视营养充分与长期可持续
近年来,专业组织相继更新 IBD 饮食管理建议,将营养状态、疾病活动度及患者的实际生活需求纳入饮食方案的选择。
各组织的关注重点有所不同,但整体上都强调营养充分、个体化管理,以及饮食干预与规范医学治疗相结合。
中华医学会消化病学分会
2026年,《中华医学会消化病学分会炎症性肠病学组》发布了《炎症性肠病生活方式管理中国专家共识》。
1、IBD患者普遍存在膳食纤维、维生素、矿物质及其他营养素摄入不足的问题,导致营养缺乏发生率较高。多种营养素缺乏与疾病活动度密切相关。患者应在医师指导下加强饮食管理并适时补充必需营养素。(共识水平:100.0%;证据质量:中等质量)
2、饮食或补充剂中增加膳食纤维对非狭窄型克罗恩病患者具有良好安全性,而合并症状性肠道狭窄的克罗恩病患者应严格限制膳食纤维的摄入。(共识水平:96.0%;证据质量:中等质量)
3、在充分保障患者每日营养需求的前提下,临床医师应结合IBD患者的肠道耐受情况,参考一般人群的健康膳食指南,对脂肪、蛋白质,以及特定种类的肉类、蔬菜和水果的摄入进行个体化调整,以实现营养均衡和症状控制的双重目标。
4、超加工食品的摄入可能增加IBD患者的疾病活动度和复发风险,并与手术等不良结局相关,建议患者在日常生活中减少此类食品的摄入。(共识水平:100.0%;证据质量:中等质量)
5、鉴于我国人群乳糖不耐受比例较高,建议对乳制品不耐受或回避的IBD患者增加其他来源的蛋白质和营养素摄入,以保证其营养需求。
6、不建议IBD患者在无明确依据的情况下减少米、面等精制谷物主食的摄入。如有调整饮食结构的需求,可在专业人士指导下适度增加全谷物的摄入。
7、以高摄入超加工食品、红肉和动物脂肪,以及低摄入蔬菜与水果为特征的西方化饮食与IBD患者的不良预后密切相关。在日常饮食管理中,患者可参考地中海饮食(高蔬菜水果、全谷物、豆类、鱼类及不饱和脂肪摄入,限制红肉和甜食摄入),含可被发酵的低聚糖、双糖、单糖和多聚糖的食物(fermentableoligosaccharides, dissaccharides,monosaccharides andpolyol;FODMAP)饮食,以及江南饮食等健康饮食模式进行食物选择。这些健康饮食模式的共同理念在于增加水果、蔬菜、全谷物、豆类、鱼类、坚果与种子类食物的摄入,同时限制红肉、加工肉类、高糖食品和饮料的摄入。(共识水平:92.0%;证据质量:高质量)
——以上内容引自:《中华医学会消化病学分会炎症性肠病学组》
国外权威指南也有相关描述:
美国胃肠病协会 (AGA)
2024年临床实践更新建议,在没有禁忌的情况下,多数 IBD 患者可以将地中海饮食作为长期健康饮食的基础。
对于症状明显的疾病活动期患者,可以短期采用低渣、低纤维饮食,并根据病情逐步恢复日常饮食。AGA 对长期严格限制性饮食持谨慎态度,包括长期维持低 FODMAP 饮食。
此外,减少红肉和加工肉类摄入可能有助于降低溃疡性结肠炎的发作风险,但在克罗恩病中尚未观察到同样明确的复发预防效果。
欧洲克罗恩病和结肠炎组织 (ECCO)
2025年饮食管理共识强调保障充足的营养摄入,避免缺乏明确适应证的长期限制。对于活动期或存在肠梗阻症状的患者,可以根据临床情况短期调整饮食。
ECCO 还建议尽早引入具备 IBD 管理经验的营养师,协助评估营养状态、制定个体化方案,并提高长期饮食管理的可执行性。
国际炎症性肠病研究组织 (IOIBD)
IOIBD承认,饮食干预可能在症状管理中发挥作用,或作为部分患者的辅助治疗,但不要将限制性饮食作为单一治疗方案。该组织特别强调在进行饮食干预时,要进行共同决策、密切监测营养缺乏症,并让多学科护理团队参与。
美国胃肠病学会 (ACG)
对克罗恩病和溃疡性结肠炎的相关建议也强调饮食的辅助作用。对于中重度活动性 IBD,疾病控制仍需要有效的药物治疗;部分轻症患者或有特定症状的患者,可以在专业指导下进行短期饮食调整,并获得相应的营养支持。
编辑
doi.org/10.1007/s11894-026-01047-0
综合这些建议,长期饮食管理更加重视营养充分、饮食多样性和患者的实际耐受情况。地中海饮食因其整体健康获益、食物选择相对丰富及长期可执行性,成为多数 IBD 患者可以考虑的基础饮食模式。
对于有明确临床需要的患者,针对性限制和治疗性饮食仍然具有相应的应用价值。
全肠内营养、克罗恩病排除饮食:限制可以有价值,但要有目标、有阶段
EEN:在克罗恩病中具有明确治疗地位,儿童证据尤其充分
全肠内营养(Exclusive Enteral Nutrition,EEN)在克罗恩病,尤其儿童克罗恩病中具有明确治疗地位。在规定疗程内,患者主要通过营养配方获得完整营养,以缓解疾病。
部分成年患者也可在专业指导下采用 EEN,具体应用需要结合疾病状态、营养情况及治疗目标。
CDED:“限制”也可以是结构化、阶段性的治疗
克罗恩病排除饮食(Crohn’s Disease Exclusion Diet,CDED)是一种分阶段实施的治疗性饮食,通常与部分肠内营养(Partial Enteral Nutrition,PEN)联合使用。
它并不是让患者无限期地排除越来越多食物,而是按照治疗目标规定不同阶段的饮食内容,并安排后续过渡。
2019年的一项随机对照试验纳入78名轻中度克罗恩病患儿。40人接受CDED联合PEN,38人接受EEN。CDED+PEN组的饮食耐受率达到97.5%,EEN组为73.6%,P=0.002。
第6周,采用更严格缓解标准时,两组无激素缓解率分别为75%和59%,差异没有达到统计学显著。
到了第12周,持续接受CDED+PEN的患者中75.6%维持无激素缓解,而EEN后转为自由饮食联合PEN的对照组为45.1%,P=0.01。
这类治疗性饮食有一个共同点:适应证、疗程和后续调整都比较明确,通常由医疗和营养专业人员共同管理。研究也强调,限制性饮食应有明确目标和时间边界,并安排结构化的食物重新引入。
限制要有开始,也要有退出机制。
这也给“动态扩容”划出了边界:病情需要时可以限制,条件改变后,就该重新评估那些曾经被停掉的食物。那么,什么时候可以加回来?吃完不舒服又该怎么看?
编辑
IBD 患者在不同疾病阶段的饮食需求存在明显差异。
同一种食物,对不同患者可能不同;对同一个患者,在活动期、缓解期、术后恢复期,答案也可能发生变化。有没有明显狭窄、一次吃多少、食物是生的还是充分煮熟、个人有没有乳糖或其他食物不耐受,都会影响实际反应。
因此,与其不断追问“这个东西到底能不能吃”,更有效的问题是:
以现在的疾病状态,这个食物是否适合?
如果需要暂缓,原因是什么?什么时候再评估?
吃完不舒服,需要重视,但不当成炎症复发
腹胀、腹痛、排便次数增多、大便变稀,当然都值得关注。但IBD中的胃肠道症状与炎症活动并不完全同步。
有些食物进入肠道以后,因为发酵、渗透作用、食物质地或对胃肠动力的影响,可以造成产气、腹胀和排便改变,这些症状并不意味着肠黏膜炎症必然同步加重。反过来,一个人几乎没有症状,也不能据此确认肠道中完全不存在炎症。
低FODMAP研究非常适合说明这个区别
低 FODMAP 饮食最初用于肠易激综合征,主要减少容易发酵、吸收不完全的短链碳水化合物。
它在 IBD 中最有价值的场景,通常是疾病处于缓解期,但患者仍然存在腹胀、腹痛、腹泻等 IBS 样症状。
编辑
2020 年一项随机对照试验纳入 52 名处于静止期、但仍有持续胃肠道症状的克罗恩病或溃疡性结肠炎患者。27 人接受低 FODMAP 饮食建议,25 人接受对照饮食建议,干预 4 周。低 FODMAP 组 14/27(52%)报告胃肠道症状得到充分缓解,对照组为 4/25(16%)(P=0.007)。
症状上的差异很明显,但研究并没有观察到相应的抗炎变化。粪便钙卫蛋白、CRP等指标没有出现一致改善。
2025年的Meta分析汇总5项随机对照试验、共224名患者,也发现低FODMAP可以降低整体IBS样症状严重程度,SMD=-0.56,95%CI -0.90~-0.23,P=0.0009;粪便钙卫蛋白则没有显著差异,SMD=-0.20,P=0.17,而且整体证据确定性仍然有限。
编辑
随机研究还观察到长期严格低FODMAP可能减少双歧杆菌和普拉梭菌,并影响丁酸生成。
因此,目前低FODMAP饮食更适合在有IBS样症状重叠的部分IBD患者中短期使用,随后进行结构化的食物再引入。
这组研究对普通患者有一个非常实际的意义:
有时候需要调整的是量,有时候是食物形态,有时候处理的是功能性症状;如果客观炎症指标同时升高,则又属于另外一个临床问题。
看现在处在哪个阶段,再决定要不要“扩”
开始重新引入食物以前,首先需要判断当前疾病状态。
活动性炎症、IBD与IBS样症状重叠、肠道狭窄以及术后恢复,对饮食的要求差异很大。评估时除了症状,还可以结合粪便钙卫蛋白、CRP,必要时通过内镜或肠道检查了解炎症和肠道结构。
如果炎症正在明显活动,治疗炎症本身仍然是疾病管理的核心,不能因为少吃几样东西以后腹泻减少,就认为疾病已经得到控制。
如果炎症处于稳定状态,却仍有明显腹胀、腹痛和排便异常,就可以考虑是否存在IBS样功能性症状,以及低FODMAP等短期干预是否适合。
如果存在明显肠道狭窄或梗阻风险,食物质地和纤维摄入又需要单独调整。即使从长期健康角度希望增加植物性食物,也不能脱离肠道结构情况自行大量增加粗纤维。
编辑
重新引入时,一次不要改变太多
当疾病稳定、营养状态允许、又没有明确禁忌时,可以逐步尝试一些过去停掉的食物。
如果一次恢复五六种食物,第二天出现腹胀,很难知道真正的影响因素在哪里。因此,更容易观察的方法是一次尽量改变一个主要变量,从相对小的量开始,再结合食物质地和烹调方式逐步调整。
例如,一种蔬菜过去生吃容易出现明显症状,可以根据个人情况先从充分煮熟、较小份量尝试;曾经长期不吃豆类,也无需第一顿就吃很大的量。
如存在明显狭窄、既往复杂手术或其他特殊情况时,重新增加膳食纤维尤其需要医生和营养专业人员参与。
这个过程不追求“挑战食物”。主要是看这项限制今天还需不需要存在?如果不需要,我怎样把它稳妥地放回日常饮食?
观察症状、炎症、营养和微生态
重新吃回一种食物时,最容易感知的是腹胀、腹痛、排便这些变化,这些都可以记录下来。
但如果要判断这次重新引入是否合适,还需要把观察范围放宽一些,时间拉长一点。看这种反应是否反复出现,以及经过一段时间后,炎症状态、营养状态等有没有一起变化。
比如,某种食物增加以后连续几次都出现类似的腹胀,可以进一步调整摄入量、烹调方式或食物形态;
如果只是偶尔一次不舒服,之后又能够正常耐受,就没有必要急着重新把它放回“黑名单”。
——看疾病状态
除了症状记录,也可以结合粪便钙卫蛋白、C反应蛋白等炎症相关指标;医生认为有必要时,再进一步考虑内镜或影像检查。这些临床评估仍是判断疾病活动度的重要依据。
如果希望进一步了解肠道微生态,也可以把粪便菌群检测作为补充观察工具。以谷禾健康肠道菌群检测为例,样本通过粪便采集,过程相对无创;报告可提供菌群组成,以及与炎症、肠道屏障等相关的参考指标和风险评估,为理解个体的微生态状况增加指导线索。
把这些信息放在一起,更容易判断这段时间出现的腹泻、腹痛,究竟是食物耐受变化,还是疾病状态也在悄悄发生改变。
——看营养和饮食结构
除了症状和炎症相关指标,体重、肌肉量,以及铁、维生素D、维生素B12等营养指标,也值得持续关注。它们能帮助判断:随着饮食限制减少,营养摄入是否更充足,整体饮食结构是否有所改善。
编辑
例如,一位长期不吃豆类、全谷物和多种蔬菜的患者,在病情稳定后逐步增加这些食物,观察的就不只是“吃完有没有腹胀”。还可以结合粪便钙卫蛋白、C反应蛋白等临床指标,关注炎症状态是否稳定。
同时评估膳食纤维摄入和相关营养指标的变化。如果希望进一步了解饮食调整伴随的微生态变化,也可以参考菌群多样性、短链脂肪酸相关评估及相关菌群等指标。
这些信息需要放在一起理解:饮食变化、症状、营养状态、近期用药和疾病活动度都可能影响肠道微生态。菌群检测可以补充一组个体化的微生态参考信息,帮助患者和医生观察饮食结构变化与菌群特征之间是否出现值得关注的趋势。
编辑
饮食调整开始时,可以先留下自己的基线菌群状态。几个月后再复测,与自己的基线做纵向比较,就能看到随着食物种类逐步增加,菌群多样性、核心菌群、IBD风险评估,以及膳食纤维、短链脂肪酸生成能力等指标在发生的变化,通过这样不断持续记录和对比,不仅能清晰地看到哪些饮食调整对自己的菌群产生了积极影响,更能发现哪些食物可能引发了肠道不适,从而灵活地进行针对性地调整。
编辑
对于炎症性肠病(IBD)患者,限制饮食有明确适用场景,例如确诊乳糜泻、食物过敏,或在专业指导下进行有期限、有目标的饮食干预。需要重新审视的,是那些长期沿用、依据不清,或已经让饮食种类越来越少、营养摄入和生活质量受到影响的限制。“可能不耐受”不等于必须终身忌口;但重新尝试,也应建立在病情和个人风险经过评估的基础上。
如果考虑重新引入某种食物,第一步不是直接试吃,而是先弄清楚限制它的原因:曾经出现的是过敏反应、稳定重复的胃肠道症状,还是在疾病发作期偶然出现的不适?目前疾病是否稳定?是否有肠道狭窄、梗阻风险、吞咽困难等会影响进食安全的情况?既往是否有严重过敏反应?同时也要盘点体重变化、实际摄入量,以及铁、维生素B12、维生素D等营养风险。
若有狭窄或梗阻风险、严重过敏史、明显营养不良或病情活动,不宜自行进行食物挑战。
有一个比较安全可以采用一个简单、可复盘的步骤:一次只调整一种食物,从少量、容易控制的形式开始;尽量保持其他饮食和用药不变;记录食物、份量、烹调方式、症状及发生时间。若相似反应在多次摄入后重复出现,再讨论是否需要改变份量或做法、暂缓尝试,或进一步评估。若只是偶发一次不适,不必立刻把食物永久列入禁忌(除一些诱发荨麻疹、呼吸困难、喉头肿胀等严重过敏反应的食物)。
判断结果时,也不要把所有症状都归因于食物。腹痛、腹泻可能与食物耐受、感染、药物或IBD活动等多种因素有关。若症状持续或加重,应由医生结合病程和具体表现,决定是否需要粪便钙卫蛋白、血液检查、内镜和肠道菌群评估;食物过敏评估则应基于相应的病史和临床怀疑,而不是仅凭不适就进行广泛筛查。与此同时,定期关注体重、肌肉量、饮食摄入和有指征的营养指标,避免在控制症状的过程中忽略营养不足和菌群的平衡以及多样性等。
注:本文仅用于IBD和营养相关知识分享,不替代针对个体患者的医疗和营养建议。IBD活动期、肠道狭窄、术后、儿童青少年及存在明显营养不良风险的人群,饮食调整尤其需要结合消化科医生及专业营养师进行个体化评估。
相关阅读:
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
炎症性肠病中宿主与微生物群的相互作用
“灭火指南”——通过早期营养干预改善慢性低度炎症
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
肠道病原体感染定植的三个关键角色——炎症、营养与共生菌群
肠道菌群失调与炎症性肠病的关联
全面解析各类营养物质在炎症中的作用
主要参考文献
向上滑动阅览
Cunha B, Alter A, Berschback M, Park S, Gold S, Schneider Y. Rethinking Restrictive Diets in IBD: Toward an Inclusion-Focused Nutritional Paradigm. Curr Gastroenterol Rep. 2026 Sep 19;28(1):31.
Hashash JG, Elkins J, Lewis JD, Binion DG. AGA Clinical Practice Update on Diet and Nutritional Therapies in Patients With Inflammatory Bowel Disease: Expert Review. Gastroenterology. 2024 Mar;166(3):521-532.
Tu W, Li Y, Yin T, Zhang S, Zhang P, Xu G. Association between avoidant/restrictive food intake disorder risk, dietary attitudes and behaviors among Chinese patients with inflammatory bowel disease: a cross-sectional study. BMC Gastroenterol. 2025 Mar 6;25(1):144.
Godny L, Pfeffer-Gik T, Elial-Fatal S, Shakhman S, Dotan I. Nutritional composition of diets for inducing and maintaining remission in inflammatory bowel diseases: from bedside to plate. Curr Opin Pharmacol. 2026 Feb;86:102587.
Ville A, McRae R, Nomchong J, Reidlinger DP, Davidson AR, Staudacher HM, Albarqouni L. Effects of a Low FODMAP Diet in Inflammatory Bowel Disease and Patient Experiences: A Mixed Methods Systematic Literature Review and Meta-Analysis. J Hum Nutr Diet. 2025 Aug;38(4):e70106.
Gregersen L, Moos C, Hikmat Z, Fogh Rasmussen N, Petersen SR, Heitmann BL, Halldórsson ÞI, Andersen V, Christensen R. Study Design Complexity and Participant Completion in Dietary Trials for Inflammatory Bowel Disease: A Systematic Review and Metaresearch Study. Adv Nutr. 2026 Apr;17(4):100614.
谷禾健康
你有没有过这样的体验:紧张时胃里”七上八下”,悲伤时”心如刀绞”,吃到变质食物瞬间反胃,闻到油腻的甜食突然失去胃口?又或者,在某个重要会议前频繁想上厕所,而在专注工作时完全忘了饥饿?
这些日常体验背后,是一套对身体内部状态进行感受、解释和整合的系统,被科学界称为“内在感知”(interoception)。
我们习惯把眼睛、耳朵、鼻子理解为感觉器官,却很少意识到,身体内部同样有一套庞大的感觉网络。
它负责监测身体内部的状态——心率、血压、呼吸、体温、血糖、肠胃的扩张与收缩、炎症信号、微生物代谢产物——并把这些信息源源不断地送往大脑。大脑再据此做出判断:饿了、饱了、恶心、舒服、焦虑、安全。
内在感知其实是大脑持续认识身体的一种方式。大多数时候,你不会清楚感觉到自己的血糖正在被调节…大量内部信息会先在脑干、下丘脑、自主神经和内分泌系统中被自动处理,只有其中一部分最终进入意识,变成我们熟悉的感觉。
所以,“感觉”从来不是大脑凭空制造出来的体验。大脑需要身体不断提供信息,才能知道自己正在管理的是一个怎样的身体。
在所有内脏器官中,肠道是一个尤其特殊的界面。它每天直接面对食物、机械扩张、化学物质、炎症以及复杂的微生态,同时又通过激素、免疫和神经通路不断与大脑交换信息。
编辑
2026 年发表在《Nature》上的一项里程碑式研究表明:衰老过程中肠道菌群的变化会通过一条“微生物—肠道—大脑”通路损害海马体的记忆编码,而恢复迷走神经的感觉输入有可能逆转认知衰退。这项研究与此前一系列证据共同指向一个逐步清晰的结果:肠道的感觉功能,是理解我们如何进食、如何感受、如何记忆,以及如何衰老的关键。
本文将系统梳理内在感知的科学图景和应用前景:它是什么,它的神经元如何连接大脑,肠道为何是内在感知的枢纽,微生物组如何参与感知与记忆,内感知失调如何导致饮食障碍、功能性胃肠病和认知衰退,以及为什么肠道微生态有望成为连接科学、临床与产业的重要桥梁。
我们最熟悉的是视觉、听觉、嗅觉、味觉和触觉。这些感觉有一个共同特点:它们主要帮助神经系统理解外部世界。
比如,眼睛告诉大脑哪里有光,耳朵告诉大脑哪里有声音,皮肤告诉我们哪里受到了压力或高温…
神经科学把这类面向外界的感觉称为外感知(exteroception)。
但一个生命体只知道外面发生什么,显然还不够。我们无法知道自己是否饿了、渴了、累了、发烧了、组织受伤了。因此,神经系统还进化出一整套面向身体内部的监测体系——内感知。
1906年,英国生理学家查尔斯·谢灵顿在《神经系统的整合作用》中,用“内感受”来区分来自身体内部与外部的感觉输入;在当时的分类中,它主要指来自内脏的信号。今天,内感知的含义已经明显扩展,不只包括传统的内脏感觉,也涉及对营养、代谢、温度、炎症、机械状态等身体信息的综合表征。
感觉到一个信号,和“知道自己感觉到了什么”,其实不是一回事
这里需要先区分两个容易混在一起的概念:
感觉(sensation)和 知觉(perception)。
所以,我们最终意识到的“饿”“饱”“痛”“恶心”“舒服”,并不是某一个感受器直接告诉大脑的答案,更像是大脑收到许多数据以后,做出的一次综合判断。
这也意味着,内在感知是否正常,不仅取决于身体有没有发出信号,也取决于神经系统怎样读取和解释这些信号。
编辑
doi.org/10.1016/j.neuron.2025.11.026
大部分身体信息,其实我们意识不到
正常情况下,我们不会时时感到自己的血压、血糖、胃排空速度和肠激素水平正在变化。这些信息大量由脑干、下丘脑、自主神经和内分泌系统自己处理,用于维持血压、体温、水盐平衡、能量状态等基本稳态。
只有当某些信号达到一定强度,或者对行为具有足够重要的意义时,它们才更容易进入主观体验。比如:
所以,内感知首先是一套维持生命稳态的监测系统,其次才成为我们能够明确描述的“感觉”。
而这些感觉最终又会推动行为:饿了去找食物,渴了去喝水,疼痛让人避开损伤,恶心帮助减少继续摄入潜在有害物质。
编辑
“身体内部”和“外部世界”的边界,没有那么清楚
按照定义,外感知感受外界,内感知监测身体内部。但实际上没有那么分工明确。
肠道就是最典型的例子。
从解剖上看,消化道是一条从口腔一直延伸到肛门、与外界相通的管道。肠腔里的食物、细菌和消化液,在拓扑学上仍然位于身体”外部”——它们尚未被吸收进入血液。
但身体不可能把它们当成与自己无关的东西。肠壁上的感受器把这些内容物的化学组成、渗透压、机械张力和微生物代谢物当作内部信号来处理。
肠道是一个把外部世界翻译为内部信号的界面。
味觉也说明了这条边界有多模糊。
食物还在口腔时,TAS1R、TAS2R等受体参与识别甜、鲜、苦等化学特征,这通常属于外感知;而相同或相关的受体也表达在胃肠道部分细胞中,继续参与对已经进入消化道的营养物和化学信息的识别。
于是,一份食物其实经历了两轮不同的“被感觉”:
食物离开口腔后,判断并没有结束。胃肠道还要继续识别营养、机械扩张和潜在危险,并把这些信息传给大脑。
而完成这一步的,正是肠壁上一整套精密的感觉系统。
从感觉的角度看,肠道更像一个由上皮细胞、肠内分泌细胞、免疫细胞、神经网络共同组成的感知界面。
它要完成的事情,可以简单概括成三步:
肠道和舌头,共用一部分“味觉分子”
在舌头上:
注:人类拥有大约25种TAS2R苦味受体,用来识别范围很广的苦味化合物。
有意思的是,这些受体并不只存在于舌头。相同或相关的TAS1R、TAS2R受体也表达在胃肠道的一些细胞,尤其是部分肠内分泌细胞中。
舌头上的受体在肠道,任务发生了变化
例如,肠道中的甜味感受机制可以与葡萄糖感知和GLP-1、GIP等激素释放相联系;而苦味受体检测到某些生物碱、毒素或药物成分后,则可能参与改变胃肠动力、防御和回避反应。
编辑
doi.org/10.1016/j.neuron.2025.11.026
肠道对营养的判断并不只依靠这些“味觉受体”
葡萄糖还有SGLT1等感知和转运机制;脂肪酸可以通过CD36、FFAR1、FFAR4等分子被识别;氨基酸和肽类也有各自的感知通路。
所以说,身体把一部分原本用于识别食物化学性质的分子工具,同时部署在了口腔和肠道。
而把这些糖、脂肪、氨基酸和其他化学信息进一步翻译成激素与神经信号的关键角色,就是接下来要说的肠内分泌细胞(EECs)。
专业延伸|肠道到底有多少种“分子天线”?
如果把肠道的感觉装备展开,会看到一个非常庞大的分子工具箱。
碳水化合物相关感知包括TAS1R2/TAS1R3、SGLT1以及KATP等;
脂肪酸和脂质信号可涉及CD36、FFAR1(GPR40)、FFAR4(GPR120)、FFAR2(GPR43)、FFAR3(GPR41)、GPR119;氨基酸和肽类可以涉及TAS1R1/TAS1R3、CaSR、GPRC6A等;
机械感知涉及PIEZO1/PIEZO2以及感觉神经末梢;
TRPV1、TRPA1参与刺激、炎症和伤害性化学信号;
TLR、NOD1/NOD2负责识别部分微生物结构成分;
AhR可以读取部分菌群色氨酸代谢信号;
FXR、TGR5则参与胆汁酸信息的识别。
肠内分泌细胞:把“吃进来了什么”翻译成身体语言
肠内分泌细胞(EECs)在整个肠上皮细胞中所占的比例并不高,却分布在整个胃肠道,能够检测碳水化合物、脂肪酸、氨基酸、胆汁酸以及其他肠腔信号,再释放不同的激素和信号分子。
比如:
注:
L细胞主要分布于回肠和结肠,在小肠近端也有少量分布。它们可响应碳水化合物、脂肪、蛋白质消化产物及短链脂肪酸等微生物代谢物,分泌GLP-1和PYY。GLP-1可增强葡萄糖依赖性胰岛素分泌、抑制胰高血糖素并延缓胃排空;PYY则参与抑制胃肠动力和食欲。
K细胞主要位于十二指肠和空肠,分泌葡萄糖依赖性促胰岛素多肽(GIP)。GIP可响应葡萄糖、脂肪等营养物质,并促进葡萄糖依赖性胰岛素释放。
胃饥饿素主要由胃底和胃体的P/D1细胞分泌;胰腺ε细胞也可产生胃饥饿素,但在成年人体内数量较少。胃饥饿素通常在餐前和空腹时升高,可刺激食欲并促进生长激素释放。
肠嗜铬细胞(EC细胞)是胃肠道5-羟色胺的主要来源,胃肠道合成的人体5-羟色胺约占全身的90%以上。EC细胞可响应机械刺激、营养物质、炎症信号以及微生物及其代谢物,释放5-羟色胺,参与调节肠道蠕动、分泌和内脏感觉。
编辑
所以,肠内分泌细胞很像一种“翻译器”。
编辑
所以说,大脑不是直接“闻到”肠道里的葡萄糖,而是读取肠道细胞对葡萄糖作出的反应。
肠道不仅知道“吃了什么”,还知道“装了多少”
我们吃一顿饭什么时候应该停止?
如果说只看热量,那么一碗汤和一小块高能量甜点,即使热量相近,对胃造成的机械刺激也完全不同。
因此,胃肠道还有另一套感觉:机械感知。
胃壁撑开、肠道发生牵张和收缩,这些物理变化都会激活机械敏感结构。其中,迷走感觉神经在胃肠壁中形成机械感受末梢,可以读取器官的扩张和张力;PIEZO2等机械敏感离子通道也参与对胃肠扩张的检测。
所以,“胃里装满了”并不是一个单纯的物理状态。胃扩张需要先被转换成神经活动,这样大脑才知道是饱了。
编辑
有些肠道细胞,甚至可以直接连上感觉神经
过去人们常把肠道和大脑之间的交流想象成一个比较缓慢的过程:肠道检测到食物,释放激素;激素进入血液;最后影响大脑。
近年的研究发现,部分肠内分泌细胞可以通过被称为神经足(neuropod)的基底突起,与迷走感觉神经形成突触样连接。
也就是说,某些来自肠腔的营养信息并不需要完全依赖激素进入全身循环,而可以通过局部的细胞-神经连接快速转化为神经信号。
研究表明,突触样连接适合较快速、局部的信息传递,而激素信号则可以产生更持续、更广泛的代谢调节。
这也改变了我们对肠道的理解。它并不只是一个“吃完以后慢慢分泌激素”的器官。其中一部分细胞的功能,更接近真正的感觉转译单元:
肠神经系统——本地处理网络
肠壁内部还有一套复杂的神经网络——肠神经系统(ENS)。它主要由肌间神经丛和黏膜下神经丛组成,可以在局部调节胃肠运动、分泌和血流,也包含能够响应机械和化学变化的神经元。
因此,肠道里的每一次变化都不需要先上传大脑,再等待大脑下命令。
很多事情可以在当地完成:
从信息处理的角度看,肠神经系统更像一个本地网络:先处理一部分肠道信息,再与迷走神经、脊髓感觉通路以及自主神经系统持续交流。
编辑
肠道的信息通过不止一条路进入大脑
至少有三类重要路径共同参与:
其中,迷走传入是目前研究最充分的肠-脑感觉线路之一;脊髓传入则尤其参与机械、痛觉以及部分代谢信号。
研究将肠-脑通信概括为对机械、化学、激素和其他肠道输入的共同整合,由此参与饥饿、饱腹、代谢和稳态调节。
所以,一顿饭进入胃肠以后,身体得到的是一堆信号组合,同时包含:营养成分、体积、机械张力、激素变化以及局部生理状态。
然而,肠内分泌细胞和免疫细胞面对的,并不只有我们吃进去的食物。
肠腔中还有数以万亿计、不断进行代谢活动的微生物。它们自己没有神经,却能够改变肠道感觉细胞所面对的化学环境。那么,微生物又是怎样接入这套内感知系统的?
微生物虽然不能像神经元那样“感觉”,却可能改变人体感觉系统正在读取什么。
微生物不断制造代谢物、释放自身成分,也会改变肠道感觉细胞和神经的状态。所以,菌群参与内感知主要有三个层面:
微生物产生了哪些信号?
肠道微生物会利用我们吃进去的食物继续代谢,产生大量宿主自身不会以同样方式产生的分子。
最典型的是短链脂肪酸 (SCFAs)
膳食纤维进入结肠后,可以被微生物发酵成乙酸、丙酸和丁酸等短链脂肪酸。
短链脂肪酸通过 FFAR2(GPR43)和FFAR3(GPR41)受体被肠上皮细胞、免疫细胞和神经元感知。
次级胆汁酸是另一类重要微生物代谢物
肠道菌群将肝脏合成的初级胆汁酸转化为次级胆汁酸(如脱氧胆酸和石胆酸),后者通过FXR 和 TGR5 受体调节脂质代谢、葡萄糖稳态和肠激素分泌。
另一个重要例子是色氨酸代谢
色氨酸代谢物(吲哚、吲哚丙酸、犬尿氨酸等)由细菌分解膳食色氨酸产生,可激活芳香烃受体(AhR),调节屏障功能和免疫,并与 5-羟色胺合成竞争同一前体,间接影响情绪相关通路。
所以,同样一顿饭进入不同的肠道微生态,最后形成的化学信号并不一定相同。食物是原料,微生物参与了二次加工。人体读取到的除了食物本身,还有这些食物在这个微生态中被加工成了什么。
身体如何识别微生物及其信号?
微生物产生信号之后,还需要有人能够“听见”。
这个“接收端”就是宿主细胞上的各种感受器。
编辑
除了上述微生物代谢物层面,身体还能够识别微生物本身的一些分子特征。例如,TLR(Toll样受体)家族可以响应脂多糖、鞭毛蛋白等微生物相关成分,NOD1、NOD2则能够识别细菌肽聚糖的特定片段。
也就是说,人体不仅能够感知“这里有糖”“这里有脂肪”,还能够在一定程度上判断:这里出现了什么样的微生物信号。
这些受体广泛存在于上皮和免疫系统中,因此微生物组成或活动发生变化时,宿主接收到的免疫信息也会随之改变。
这一步很重要,因为免疫系统本身也是内感知网络的一部分。
一些研究把肠道免疫细胞视为一种感觉中继(sensory relay):它们可以读取微生物抗原和代谢物,再通过细胞因子、局部神经以及其他途径,把肠腔环境的变化转化成宿主内部信号。例如,短链脂肪酸可以通过FFAR2作用于某些免疫细胞。
因此,大脑并不需要直接接触肠腔里的细菌。很多信息在到达神经系统之前,已经先经过了一轮翻译:
微生物或代谢物 → 上皮和免疫细胞识别 → 内分泌、免疫或神经信号。
菌群又怎样改变人体的感觉系统?
如果微生物只是制造一些代谢物,那么它们还只是这套感觉系统里的“信号源”。但实际上它们可以进一步影响负责读取信号的细胞本身。
例如,肠内分泌细胞不仅能感知营养,也可以感知微生物来源的代谢物。研究已经显示,某些细菌色氨酸代谢产物能够被EEC读取,并进一步激活肠神经和迷走通路。
部分EEC还表达TLR5等模式识别受体,可以对细菌鞭毛蛋白作出反应并改变PYY等信号的释放。
肠嗜铬细胞、免疫细胞、肠神经元以及外周感觉神经的兴奋性,也都可能受到微生物及其代谢环境影响。
因为菌群改变的,已经不只是:“肠道里有什么信号。”它还可能改变:“谁在接收这些信号,以及接收得有多敏感。”
同样的营养物、同样的机械刺激,在不同的肠道微生态和免疫状态下,最终进入神经系统的信息强度和性质,都可能有所不同。
于是,菌群和内感知之间的关系,更像一个不断变化的信号网络:饮食改变微生态,微生态改变代谢和免疫环境,代谢和免疫环境又改变肠道感觉细胞与神经的工作状态。
所以,与其说“菌群在感觉”,不如说:菌群正在参与决定,我们的身体能够感觉到什么。
我们通常以为,喜欢一种食物,是因为它好吃。但越来越多的研究发现,食物进入肠道之后产生的信号,也会反过来参与塑造我们对食物的选择。
摄入后的肠道信号,也会强化食物偏好
肠道并不是简单地向大脑报告“有食物进来了”,它能够分辨不同类型的营养输入。
糖、脂肪、蛋白质等进入胃肠道后,会分别被肠上皮、肠内分泌细胞以及感觉神经上的不同分子机制识别;CCK、GLP-1、PYY等肠道激素,再与胃肠扩张等机械信号一起调节迷走传入和脑干、下丘脑中的进食回路。
编辑
doi.org/10.1016/j.neuron.2025.11.026
这种信息甚至可以细化到是什么营养物。
动物研究显示,向胃内直接灌注糖或脂肪,会激活结状神经节(nodose ganglion)中不同的迷走感觉神经元群体;也就是说,肠-脑通路并不是用一个笼统的“热量信号”处理所有营养物。
同时,糖、脂肪和蛋白质等营养物的摄入后信号,还可以降低下丘脑AgRP神经元的活动。AgRP神经元是重要的“饥饿神经元”,在能量不足时活跃,并参与把食物的感官线索与摄入后的营养结果建立联系。
所以,肠道反馈除了吃饱之外,还在参与一个学习过程:某种味道和气味之后,通常会带来什么营养结果。
糖和甜味剂,进入肠道后的信号不同
糖是这套机制里研究得最清楚的例子之一。糖和非营养性甜味剂都可以激活口腔甜味系统,因此在舌头这里它们都可以产生甜。
但进入小肠后,开始分开。
发表在《Nature Neuroscience》的一项小鼠研究发现,十二指肠中的一类神经足细胞(neuropod cells)能够直接与迷走神经形成突触,并区分真正的糖和非营养性甜味剂。
这种区分甚至发生在分子和神经递质层面。
葡萄糖的识别涉及SGLT1等钠-葡萄糖转运机制,随后促使神经足细胞释放谷氨酸;而三氯蔗糖等甜味剂更多通过甜味受体通路,引发以ATP为代表的嘌呤能信号。也就是说,同样是“甜”,肠道细胞向迷走神经发送的却不是同一种信号。
在小鼠中,抑制十二指肠神经足细胞,或者阻断其谷氨酸信号后,动物原本明显的蔗糖优于三氯蔗糖的偏好显著减弱。
这说明,糖的营养强化并不只是因为它在嘴里更甜,而与小肠向大脑发送的快速神经信号有关。
肠道不是在判断“真假”,而是在识别甜味刺激是否同时伴随着可以被吸收、代谢的葡萄糖信号。
糖和脂肪会进入不同的肠-脑奖赏回路
发表在《Cell Metabolism》的研究发现,在小鼠中,向胃肠道直接输入糖和脂肪,会分别激活不同的迷走感觉神经元群体。
这些信号进入中枢后,又分别招募不同的黑质-纹状体多巴胺通路(nigrostriatal dopaminergic pathways),从而形成针对糖或脂肪的营养强化。
这里有两个很重要的信息。
第一,大脑并不是只计算“摄入了多少卡路里”。
它保留了营养物类别的信息。糖是一种信号,脂肪是另一种信号。
第二,当糖和脂肪同时出现时,两条通路可以叠加。
研究中,即使控制热量因素,同时激活糖和脂肪的肠-脑回路,产生的纹状体多巴胺信号和进食强化也强于单独激活其中一条通路。
这为理解为什么高糖+高脂的食物特别容易形成强烈强化,提供了一种神经生理解释:它们并不只是味道更好,还可能同时调动两套相对独立的摄入后奖赏线路。
而且,两种营养物上传大脑的路线也并不完全一致。
现有动物研究提示,肠道脂肪的信息主要依赖迷走传入,而葡萄糖除迷走神经外,还可以通过脊髓感觉传入向中枢报告。
大脑会学习“这个味道后面跟着什么营养”
这些摄入后信号最终还会参与一种非常重要的学习:风味-营养学习(flavor–nutrient learning)。
假设一种新的味道反复与葡萄糖进入肠道同时出现。
最初,大脑可能只知道“这是某种味道”;但随着肠道不断反馈葡萄糖的营养结果,这个味道就逐渐获得了预测意义:闻到或尝到它,大脑就开始预期后面会有能量。
AgRP神经元正参与这一过程。
动物研究显示,营养物到达胃肠道后产生的摄入后信号,是调节AgRP神经元活动的重要因素;而AgRP神经元的活动又参与把外部食物线索与后续营养价值建立关联。
编辑
菌群可能进一步改变这种“营养-奖赏”关系
不同的饮食长期进入肠道,会选择不同的微生物生态;而不同的菌群又会产生不同的短链脂肪酸、胆汁酸衍生物和其他代谢物,并影响EEC、免疫细胞、肠神经和感觉神经的状态。
因此,理论上存在一个持续反馈的过程:
饮食改变菌群,菌群改变肠道信号环境,肠道信号又参与调节饱腹、奖赏和下一次进食。
动物研究已经提供了一些更直接的线索,这种影响可以进一步触及奖赏和选择系统。
动物研究显示,将具有不同觅食策略的野生啮齿动物菌群移植给无菌小鼠后,受体小鼠的自愿饮食偏好也出现差异;另一些研究则证明,微生物来源的代谢物能够通过感觉神经调节纹状体多巴胺和动机行为。
因此,更合理的理解是:菌群可能参与塑造食物偏好的生理背景,而不是单独决定食物偏好。
总的来说,我们想吃什么,取决于多方面因素,舌头对食物的即时评价,肠道对营养后果的反馈,大脑对过去经验的学习,以及微生态对这些身体信号环境的持续影响。
正常情况下,这套系统帮助我们把“想吃”“需要吃”和“已经够了”协调在一起。但如果身体发出的信号变弱、变强,或者大脑对这些信号的解释发生偏差,会发生什么?
下一章节我们来看,内在感知研究的另一个核心问题。
正常情况下,内在感知系统并不需要让我们意识到它的存在。但如果这套系统出现偏差,情况就会不同。
有时是身体发出的信号变弱了,大脑没有得到足够的信息;有时是感觉神经过度敏感,原本普通的刺激被不断放大;还有一些情况下,在大脑对身体信号的整合和解释过程中可能出现问题。
于是,原本用于维持稳态的感觉系统,也可能参与疾病。
进食障碍:饥饿和饱腹信号也可能出现偏差
进食行为看起来是一个主动选择,但它始终建立在身体信号之上。
以神经性厌食症为例,研究显示,患者可出现胃排空延迟、餐后CCK信号增强以及对胃扩张更敏感,少量进食就可能产生明显的饱胀、恶心。
同时,负责整合身体内部状态的岛叶皮层也存在异常,使实际营养不足与主观饥饿感之间出现脱节。长期限制进食又会反过来改变胃肠动力、激素分泌、菌群,形成“进食减少-生理改变-内感知进一步异常”的循环。
神经性贪食症和暴食障碍则可能呈现另一种模式:胃排空加快,对胃扩张和CCK等饱腹信号的迷走反应减弱,使停止进食所需的反馈变得迟钝;反复催吐、泻药使用等行为又会进一步扰乱胃肠反射。
暴食障碍患者常伴有肥胖,而肥胖本身会削弱肠-脑饱腹信号:高脂高糖饮食降低迷走神经对 GLP-1、CCK 的敏感性,菌群失调引发的低度炎症干扰下丘脑和脑干整合。
这种异常并不局限于胃肠道。
进食障碍研究中还常观察到内感知准确性下降:患者不仅较难判断心跳等内部信号,对饥饿、饱腹与情绪状态的区分也可能更加困难。
功能性胃肠病:为什么正常的肠道信号会变成不适?
在功能性胃肠疾病中,肠易激综合征(IBS)和功能性消化不良(FD)是最典型的代表。现在,这类疾病越来越多被归入“肠-脑互动障碍(DGBI)”,问题往往涉及肠道感觉、免疫、神经和大脑加工的共同异常。
其中,内脏高敏感是理解 IBS 和部分 FD 症状的重要机制之一。同样程度的肠道扩张,在内脏高敏感患者身上更容易产生腹痛、腹胀和明显不适。
这种高敏感可以从肠壁开始
动物实验通路:肠道代谢物异戊酸(isovalerate)可以激活肠嗜铬细胞上的OLFR558,促进5-羟色胺释放;随后,黏膜感觉传入对肠道扩张变得更加敏感。抑制肠嗜铬细胞后,这种内脏高敏感可以减弱。
免疫系统也参与放大信号
肥大细胞释放的组胺可以使内脏感觉神经敏化;与此同时,支配结肠的部分TRPV1⁺背根神经节神经元表达机械感受通道PIEZO2,在IBS动物模型中参与把结肠扩张转化为过强的疼痛反应。
就是说,同样的机械刺激,经过微生物代谢物、5-HT、组胺和感觉神经兴奋性的共同调节,最终产生的神经输出可以完全不同。
编辑
异常还会继续向上传递
研究显示,持续的内脏刺激可伴随脊髓、脑干敏化,以及岛叶、前扣带回、杏仁核等区域对疼痛和不适信号加工的改变;下行疼痛抑制也可能减弱。
压力则通过另一方向加入这套回路。
因此,肠-脑互动障碍中的症状并不一定意味着肠道受到的刺激更强,也可能是微生态、免疫和感觉神经共同改变了内脏信号的编码与放大方式。
衰老与认知衰退:当肠道传给大脑的感觉输入变弱
如果说前面的肠-脑互动障碍更像是内脏信号被过度放大,那么衰老可能出现另一种情况:感觉输入本身变弱。
《Nature》研究发现,小鼠随年龄增长,肠道菌群组成和功能发生变化,其中 Parabacteroides goldsteinii增多,并伴随中链脂肪酸(MCFAs)积累。
进一步实验显示,P. goldsteinii 培养上清中富集的 3-羟基辛酸(3-HOA) 等小分子可以复制部分认知损伤,提示关键是其产生的代谢信号发生了变化。
从代谢物到迷走神经,中间隔着免疫系统
这些中链脂肪酸会激活主要表达在巨噬细胞、单核细胞和中性粒细胞上的GPR84,促进 TNF、IL-1β等炎症信号。
值得注意的是,研究观察到的炎症主要集中在胃肠道及相关外周组织,而不是先出现广泛脑内炎症。
接下来受影响的是迷走感觉神经。
携带老龄相关菌群的年轻小鼠在接受肠道营养刺激时,结状神经节中响应的迷走神经元数量减少、反应幅度下降;实验性抑制 PHOX2B⁺TRPV1⁺迷走感觉神经元,也会造成海马新异反应减弱和记忆受损,而破坏相应的脊髓传入并没有产生同样效果。
编辑
感觉通路受损,而非肠道信号缺失
研究者还从不同位置干预了这条通路。
针对相关肠道细菌的噬菌体可以降低 MCFA 水平;敲除或抑制 GPR84 可以减轻认知损伤;而使用 CCK、GLP-1 刺激迷走感觉通路,则能恢复部分海马反应和记忆表现。
一个很关键的发现是:衰老过程中 CCK 和 GLP-1 本身并没有明显减少。也就是说,问题不一定出在“肠道没有发出信号”,而可能出在感觉神经对信号的响应能力下降。
因此,总的来说,认知功能的变化,不一定全部起源于大脑内部。外周微生态和免疫环境,也可能通过改变身体向大脑发送的感觉输入,间接影响脑功能。
我们的身体感受发生在当下,但大脑读取到的,未必完全是一个“只属于今天”的身体。
肠道菌群具有很强的可塑性:一次感染、用药,都可能让群落发生变化。但它同时又具有历史依赖性——扰动结束之后,微生态并不一定完全回到原点。过去长期的饮食、药物和生活环境,可以在今天的菌群中留下持续的生态痕迹。
长期饮食和生活环境,会不断重新筛选菌群
2018 年《Cell》研究比较了生活在泰国和美国的苗族、克伦族人群,并追踪了部分移民。研究发现,迁居美国后,肠道菌群的多样性和部分功能迅速发生变化,植物纤维降解相关能力减少;而且这种“西方化”趋势会随着在美国居住时间增加而加深,并可跨代累积。
编辑
doi: 10.1016/j.cell.2018.10.029
菌群保存的是,事件留下的生态后果
菌群不会保存某一顿饭、某一次焦虑或某段生活的具体内容,它没有神经元意义上的情景记忆。
更准确地说,是过去的环境通过反复的生态选择,改变了哪些微生物能够留下、哪些功能被保留,以及整个群落更倾向于产生怎样的代谢环境。
因此,菌群更像一份生态档案,过去形成的菌群状态仍在今天继续代谢食物、改造胆汁酸、产生微生物代谢物,并影响上皮、免疫和感觉神经。
这正是它与内感知发生联系的地方。
过去的生态痕迹,可以进入今天的内感知
我们前面讲到的,2026 年《Nature》的衰老研究把这件事展示得尤其具体。随着小鼠年龄增长,菌群的物种组成和微生物基因功能都发生系统性改变,其中P. goldsteinii随年龄增加;这种老龄相关微生态状态可以通过共居和菌群移植转移到年轻小鼠,并影响它们的认知表现。
编辑
从身体感觉,到“我是谁”
神经科学家 Antonio Damasio 曾把自我区分为不同层次:
从这个角度看,“自我”并不完全从思想和记忆开始。在我们能够回答“我是谁”之前,大脑其实一直在处理另一个更基础的问题:
“我的身体现在怎么样?”
心跳快还是慢,呼吸是否顺畅,胃里是空还是满,身体是轻松还是紧绷,有没有疼痛、恶心、疲劳或其他内部变化——这些信息经过脑干、岛叶以及其他脑区不断整合,共同构成了我们对“此刻的自己”的身体背景。
这也解释了为什么,当内感知发生明显改变时,受到影响的有时不只是某一种身体感觉。
这些现象背后的机制远比单一脑区复杂,但它们至少提示了一点:稳定的自我体验,本身就与大脑持续获得和整合身体信息有关。
肠道,正是这套身体信息的重要来源之一。进食后的机械扩张、营养信号、肠激素、免疫状态以及微生物产生或改造的代谢物,都可能参与塑造大脑正在读取的“身体背景”。
所以,关注饥饿、饱腹、胃肠不适、压力下的身体变化,更深一层,它是在学习分辨:身体正在告诉我什么,而我又是怎样感觉到自己的。
这也让接下来的实践有了更明确的意义,这条从身体信号产生、被感知、被传递,到最终被大脑解释的信息链需要尽可能保持稳定和清晰。
讲到这里,一个很自然的问题是:既然肠道、菌群、免疫和感觉神经共同参与内感知,我们能做什么来维护这套系统?
首先需要明确,目标并不是让身体越敏感越好。前面章节我们已经看到,感觉信号过度放大可以表现为内脏高敏感,反应过弱又可能造成身体信息上传不足。更理想的状态是:信号来源稳定、接收不过度、神经传递保持适当增益,大脑能够区分和解释这些身体信息。
先让饥饿和饱腹信号变得清晰
一顿饭进入胃肠道后,大脑并不是等到“胃装满了”才知道该停下来。维护内感知的第一步,是尽量保留 “饿—吃—饱” 之间清晰的身体变化。
长期不停吃零食、边工作边无意识进食,或者习惯性吃到非常撑,都会让我们越来越少注意餐前饥饿和餐后饱腹之间的差别。
实践上更值得做的是:减少持续性的无意识进食,避免把“明显过饱”当成一顿饭正常结束的标准,也给胃肠和大脑一点时间完成饱腹反馈。细嚼慢咽,别在信号传给大脑之前就吃完了。
并不意味着所有人都必须严格三餐,重点是:
给每一次进食留下相对明确的开始和结束,让身体状态有机会被区分。
维护感觉系统运行的生理背景
压力正是影响这套背景的重要因素。HPA 轴和交感神经可以改变胃肠动力、肠道通透性和免疫反应,并进一步影响肠道感觉状态。
比如避免忙到白天不吃、晚上集中暴食,或者压力一大就持续吃高糖高脂食物。稳定的进食节律,本身就在给肠道提供更清晰的营养和饱腹信号。
例如工作结束后短暂步行、缓慢呼吸,或安静休息几分钟,再进入进食或睡眠,避免身体长期停留在“持续应激”的状态。
压力之后是否更容易腹胀、腹泻、便秘、反酸或食欲异常?这种重复出现的模式,本身就是重要的内感知信息,也能帮助我们更早识别身体的应激反应。
如果胃肠道症状长期与焦虑、压力高度同步,可进一步评估脑-肠互动,而不是简单归因于“肠胃不好”或“想太多”。
运动还能加速胃排空,并在某些情况下降低结肠癌风险。这种关系可能是双向的。临床前研究表明,特定肠道菌群模式可通过影响大脑中与运动相关的区域而改变运动表现。
例如,细菌产生的脂肪酸酰胺可激活肠神经系统中的内源性大麻素受体,增强运动过程中的神经元活动,并通过多巴胺通路提升运动能力。这提示存在一个正向反馈循环:运动促进肠道健康,而健康的肠道又可能提高运动的意愿和表现。
编辑
doi.org/10.1016/j.neuron.2025.11.026
重新学习区分:饿、饱、不适,还是情绪?
很多身体感觉本来就不是泾渭分明的。饥饿可能表现为胃部空虚,也可能只是注意力下降…因此,需要建立自己的“刺激-身体反应”对应关系。
同时,也可以观察某些食物、睡眠不足或压力是否总与同一种胃肠反应同时出现。主要是提高内感知的分辨率——逐渐知道哪些只是短暂波动,哪些信号要回应,哪些在反复提示同一个问题。
菌群:你给它什么底物,它产生什么
饮食提供底物 → 菌群代谢能力被调用 → 肠腔化学环境改变 → 宿主接收到的信号改变。
对于没有明显胃肠症状的人,更实际的做法不是追逐某一种“明星益生菌”,而是让菌群长期面对更多样的底物来源。例如:
重点在于持续提供不同类型的碳水化合物、植物化学物和其他微生物可利用底物,让菌群维持较丰富的代谢空间。
但“增加底物”并不意味着纤维越多越好。
对 IBS 来说,关键是吃对纤维
对于容易腹胀、腹痛的人,一次大量增加麦麸、粗粮、豆类等高度发酵食物,可能反而增加肠腔产气和扩张。肠道本身如果已经存在内脏高敏感,同样程度的扩张也可能产生更明显的不适。
因此,IBS 人群更强调类型和耐受量。
目前更支持可溶性纤维,例如燕麦和车前子壳等尤其对于以便秘为主的 IBS,可以从较低量开始,逐渐增加,根据腹胀和排便反应调整。
如果腹胀、腹痛、排便异常仍然明显,则可以在专业指导下尝试低FODMAP饮食。
注:FODMAP 指一组容易在小肠吸收不完全、又容易被肠道微生物发酵的短链碳水化合物。常见来源包括部分乳制品中的乳糖、小麦和洋葱、大蒜中的果聚糖,豆类中的低聚半乳糖,以及部分水果和代糖中的果糖或多元醇。
对于部分 IBS 患者,减少这些底物进入肠道,可以降低渗透负荷和快速发酵造成的气体生成,从而减轻腹胀、腹痛和排便异常。
低FODMAP 不是长期戒掉所有发酵食物
比较规范的做法通常分为三个阶段:
短期限制(约 2-6 周)
→ 分组重新引入 FODMAP 食物
→ 找到个人能够耐受的种类和剂量,形成长期个体化饮食。
很多高 FODMAP 食物同时也是菌群重要的发酵底物,长期过度限制不仅会使饮食越来越单一,也可能减少部分具有益生元作用的底物。因此,它真正的目的是找出个体肠道对什么敏感,以及敏感到什么剂量。
在 IBS 内部,策略也不完全相同
因此,饮食真正需要追求的不是理论上的“最健康”,而是在营养充分和食物多样性的基础上,逐渐找到自己的微生态能够利用、自己的肠道又能够耐受的饮食结构。
身体对食物的实际反应,本身就是需要读取的一条内在感知信息。
菌群检测,如何帮助了解“内感知信号”?
以肠道菌群检测中常见的功能指标为例,短链脂肪酸就是其中非常典型的一类。报告可以从菌群及其功能信息中评估丁酸、丙酸、乙酸等相关代谢能力。
编辑
<来源:谷禾肠道菌群检测数据库>
对内感知系统来说,这些分子的意义并不只是“有益代谢物”:宿主可以通过 FFAR2、FFAR3 等受体读取短链脂肪酸信号,进一步影响肠内分泌、免疫和屏障功能。
谷禾肠道菌群检测报告中可以看到色氨酸、吲哚,以及部分神经递质相关指标。肠道菌群能够改变色氨酸进入不同代谢路径的比例,其中部分吲哚类代谢物可以通过 AhR等受体作用于肠上皮和免疫系统;而肠道 5-HT等信号又参与胃肠动力和感觉调节。
这些指标帮助我们观察,菌群是否可能正在改变一组能够影响肠道感觉环境的化学信号。
例如,一份菌群报告同时提示色氨酸、GABA 和谷氨酸相关功能偏低,而多巴胺相关功能偏高。
色氨酸并不只有制造血清素这一条去路。它还可以进入犬尿氨酸通路,也可以被肠道微生物转化成不同的吲哚类代谢物;其中一些分子能够通过 AhR 等受体作用于肠上皮和免疫细胞。
GABA 和谷氨酸这两类分子都参与神经活动,但这里的偏低不能理解成脑内 GABA 或谷氨酸不足。更值得关注的是,它们提示菌群参与局部神经活性分子生成和转化的能力可能发生了改变。
肠神经系统、肠内分泌细胞和感觉神经都生活在这样的化学环境里。于是我们可以继续提出一个假设:
如果局部神经活性信号发生改变,这个人对胃肠道内部变化的“读取方式”,会不会也跟着改变?可能表现在哪里?
有的人可能会发现,自己并不是“肚子痛得很厉害”,而是身体信号变得不够清楚。
比如:
吃饭前很难判断自己到底饿不饿;
明明已经吃了不少,却没有很清晰的饱腹感;
或者相反,一点点胃肠扩张就觉得明显不舒服。
再看多巴胺相关功能偏高,与此同时 DOPAC 等后续代谢相关指标又偏低,那是不是生成、利用和后续代谢之间是否出现了不对称?
这个人会不会更容易出现这样一种体验:
身体真正的饥饿信号并不强,但看到食物、闻到食物,或者处在压力和无聊状态时,却很容易产生“想吃”的冲动。
然后再回头看该检测者的菌群代谢、屏障、炎症、胆汁酸、SCFA、色氨酸通路能不能提供其他相关的解释线索。
如果同时看到 LPS、炎症相关指标升高,我们就要进一步考虑:是不是存在一个更偏炎症性的宿主环境,使感觉神经的阈值发生改变。
如果胆汁酸转化相关功能异常,又伴随餐后腹泻或明显胃肠反应,则可以继续考虑菌群-胆汁酸-FXR/TGR5-胃肠动力和感觉这条线。
肠上皮、免疫细胞、肠内分泌细胞和感觉神经不断读取身体内部的变化,再通过神经、激素和免疫信号把这些信息送往大脑。大脑把它们与外界环境、过去经验和当下情绪放在一起,最终形成我们主观感受到的——饿、饱、舒服、不适、紧张、安全等。
我们对自己的体验,始终建立在一个真实、不断变化的身体之上。
而肠道又让这件事变得更加复杂。我们吃进去的食物会被菌群再次加工,形成短链脂肪酸、胆汁酸衍生物、色氨酸代谢物以及各种免疫相关信号;这些变化又会被身体读取,成为内在感知信息的一部分。微生物并不会替我们思考,也不会替我们产生情绪,但它们可以改变大脑正在读取怎样的身体背景。
肠道菌群在一定程度上,为我们理解身体内部信号环境提供了微生态线索。只有将这些数据与一个人的真实饮食、排便、饥饿感、饱腹感、压力状态及身体感受结合起来,我们才有可能逐渐看清身体正在传递什么信息,以及该如何回应。
主要参考文献
Adler J, et al. Intestinal interoceptive dysfunction drives age-associated cognitive decline. Nature. 2026. DOI: 10.1038/s41586-026-10191-6.
Steensels S, Depoortere I. Chemoreceptors in the Gut. Annual Review of Physiology. 2018;80:117–141. DOI: 10.1146/annurev-physiol-021317-121332.
Singh P, et al. Vitamin D Supplementation and the Human Gut Microbiota: A Systematic Review. Nutrition Reviews. 2026;84(6):1157–1174. DOI: 10.1093/nutrit/nuaf120.
Bora SA, et al. Influence of Vitamin D3 on the Human Gut Microbiota: Current Status and Controversies. Anticancer Research. 2020;40:551–556.
Bohórquez DV, et al. Neuroepithelial circuit formed by innervation of sensory enteroendocrine cells. Journal of Clinical Investigation. 2015;125(2):782–786.
Kaelberer MM, et al. A gut-brain neural circuit for nutrient sensory transduction. Science. 2018;361(6408):eaat5236.
Williams EK, et al. Sensory neurons that detect stretch and nutrients in the digestive system. Cell. 2016;166(1):209–221.
Bai L, et al. Enteric neurons link the gut with the brain and mediate sugar appetite. Nature. 2022.
谷禾健康
医生门诊大概多数都遇到过这类病人——愁眉不展、全身都在痛、精神萎靡,可检测化验指标一通下来却全是阴性结果。面对这种情况,医生脑子里闪过的:是癔症还是类风湿关节炎?
其实,临床上其实还有一类并非少见的、却很容易被忽视的慢性疼痛疾病——纤维肌痛综合征(FMS)。
纤维肌痛以全身广泛性疼痛以及明显躯体不适为主要特征,常伴有疲劳、睡眠障碍、晨僵以及抑郁、焦虑等精神症状。因其常与其他疾病共病,藏匿在常见病下,很难被发现。
传统上认为这是一种非炎症性疾病,但随着研究不断深入,人们发现其发生发展并不只是肌肉的问题,中枢敏化、低度炎症、氧化应激、自主神经系统功能紊乱、神经炎症、肠道菌群改变都参与该病的发病机制。
这些新的认识也让饮食和营养干预逐渐受到关注。饮食可能通过影响炎症反应、氧化应激、代谢状态、肠道菌群等多个环节,对纤维肌痛相关症状产生一定影响。因此,抗炎饮食以及部分营养补充剂,也开始被视为综合管理中的潜在辅助策略。
关于纤维肌痛综合征,中华医学会以及北京大学风湿免疫研究所都专门写过专业的科普,此前谷禾写过慢性疼痛的发病风险因素,病因和主要致病机制等。
久治不愈的疼痛,基于肠道菌群调节的科学依据与临床前景
本文将进一步讨论纤维肌痛综合征发病的一些最新研究机制,以及我们日常饮食方式中的饮食方式和生活方式,包括地中海饮食、植物性饮食、低 FODMAP 饮食、排除性饮食、Omega-3 脂肪酸和抗氧化剂等补充剂和运动、心理干预等对纤维肌痛综合征症状改善或预防作用。
注:本文纳入的文献,包括纤维肌痛饮食与营养干预相关的原创研究、随机及非随机临床试验、观察性研究、系统评价、Meta 分析及叙述性综述,希望在现有研究基础上,对相关干预方式的潜在作用进行较为全面、客观的梳理和综合分析。
纤维肌痛症是一种慢性疼痛疾病,其全球患病率在 0.2%~6.6%之间不等。
纤维肌痛并不罕见
综合各项研究数据后估计其患病率约为 2%-3%。该病在女性中的发病率高于男性,尤其在 20-55 岁的人群中更为常见。
不同地理区域和临床环境下的患病率也存在差异,城市人口中的发病率通常更高。研究报道在印度城市人口和农村人口的患病率分别为每 1000 人中有 41.2 例和 32.4 例。
纤维肌痛的三类典型表现
广泛存在的疼痛
这是最主要的症状,也是所有纤维肌痛的患者都存在的症状。疼痛遍及全身各处,呈弥漫性分布,疼痛的性质也多种多样,可以表现为钝痛、刺痛、麻木痛、刀割痛、放射痛等。
编辑
这种疼痛并不是患者想象出来的。过去,由于纤维肌痛患者往往主诉较多,又常伴随焦虑、抑郁等情绪问题,一些患者的疼痛曾经被医生误认为是精神上的臆想。
但目前普遍认为,纤维肌痛患者所感受到的疼痛是真实存在的,而且部分患者疼痛程度较重,即使经过休息也不一定能够明显缓解。此外,部分患者还会表现出明显的压痛或痛觉敏感。
编辑
疲劳、睡眠和认知问题常常同时出现
很多患者还会长期受到疲劳和睡眠障碍的困扰。这里的疲劳不是忙碌之后正常的疲劳,而是一种持续性的慢性疲倦感,即使经过休息或睡眠,也还是疲劳。
睡眠问题又会进一步影响白天的精神状态,久而久之还可能伴随焦虑、易怒、情绪低落等问题,并影响工作、学习以及日常生活,影响到待人处事的方式,恶化人际关系。
与此同时,一部分患者还会出现认知功能方面的变化,例如注意力难以集中、记忆力下降、思维变慢等。
其中,一种较有代表性的认知问题被称为“纤维雾”。
注:纤维雾(Fibro Fog),或纤维肌痛脑雾,患者常形容自己类似于在雾中思考,思维不清晰,很难理解周围的环境,很难弄清楚别人想说什么,也很难集中注意力。研究表明, 50%~80%的纤维肌痛患者存在这类认知问题。
可能伴随其他多种不适
有些患者会感觉关节肿胀、疼痛或身体僵硬,但检查时又未必能够发现与症状相对应的明显异常;部分患者还可能伴随头痛、胃肠道不适,以及肠易激综合征、膀胱刺激相关症状等。
这些症状的严重程度也并非始终保持不变。不同患者之间存在明显差异,同一个患者在不同时间的症状也可能有所波动。天气变化、过度劳累以及精神紧张等因素,都可能使症状进一步加重。
总而言之,纤维肌痛的症状比较主观,缺乏特异性,辅助检查的结果多为正常,压痛点的存在可以为临床实践提供可靠的证据。
为什么纤维肌痛容易被忽视?
纤维肌痛的一个典型特点是:患者的不适明显,但常规检查却找不到与症状相对应的异常。
患者可能长期存在全身疼痛、疲劳、睡眠障碍、认知问题等多种不适,但这些症状本身缺乏特异性,在其他疾病中也可能出现。与此同时,抽血、影像学等常规检查结果又常常没有明显异常,这使得纤维肌痛很容易与类风湿关节炎、甲状腺疾病以及其他可能引起慢性疼痛和疲劳的疾病混淆。
也正因为如此,一些患者在得到明确诊断之前,往往需要辗转多个科室、接受多项检查。尽管近年来人们对纤维肌痛的认识不断提高,但漏诊和延迟诊断的情况仍然存在,其实际造成的疾病负担也可能因此被低估。
纤维肌痛的风险因素
目前,纤维肌痛的确切病因仍未完全明确,也很难用某一个单独因素解释疾病的发生。
纤维肌痛在女性中更为常见,也可以发生于任何年龄,但成年人及中年人群更常见。
纤维肌痛具有一定的家族聚集性。近亲中有纤维肌痛患者的人,其他家庭成员发生该病的风险可能相对更高。
类风湿关节炎、系统性红斑狼疮以及其他慢性疼痛性疾病患者,发生纤维肌痛的风险可能更高。
长期睡眠不足、睡眠质量差或睡眠节律紊乱,与纤维肌痛发生风险升高有关,也可能进一步增加疼痛敏感性和疲劳感。
超重、肥胖以及较低的身体活动水平都与纤维肌痛风险增加存在一定关联。肥胖还可能通过低度炎症和代谢异常加重疼痛。
长期精神压力、重大生活事件、童年不良经历或创伤后应激障碍(PTSD)等,可能增加纤维肌痛发生或症状加重的可能性。
部分患者在感染、严重外伤、手术等事件后出现纤维肌痛症状。
近年来研究发现,纤维肌痛患者可能存在肠道菌群及其代谢改变。菌群失衡可能通过脑-肠轴、免疫和代谢等途径影响疼痛敏感性。
这一潜在机制将在本文后面的章节中进一步详细介绍。
诊断关键:排除+症状匹配
目前没有特异性的检查(如抽血、拍片)能直接确诊纤维肌痛综合征,医生主要通过以下两点判断:
症状是否符合
满足“全身广泛性疼痛≥3个月”,且按压18个典型“压痛点”中至少11个有明显疼痛(部分最新标准已简化,更关注疼痛分布和伴随症状)。
注:早期的纤维肌痛诊断标准曾十分强调压痛点;而近年来的诊断标准已经逐渐弱化对固定压痛点数量的依赖,更加重视疼痛分布及伴随症状的整体评估。
排除其他疾病
需通过检查(如血常规、风湿因子、肌酶、X线等)排除类风湿关节炎、强直性脊柱炎、甲状腺疾病、贫血等可能引起类似疼痛的疾病。
① 腰部上方和下方的双侧疼痛,以集中疼痛为特征;
② 持续至少3个月的慢性全身疼痛,以18个特定身体部位中至少11个部位的触诊疼痛为特征。
除表现为全身广泛性疼痛外,还可伴发肠易激综合征、间质性膀胱炎、颞下颌关节功能障碍等相关症状。
随着研究不断深入,人们发现,纤维肌痛可能并不只是肌肉或关节本身的问题,中枢疼痛处理、神经免疫反应、氧化应激、自主神经功能以及肠道微生物群等多个环节都可能参与其中。
那么,这些变化究竟如何导致持续性的疼痛、疲劳和其他症状?饮食又可能通过哪些环节产生影响?这就需要进一步从纤维肌痛的病理生理机制说起。
中枢敏化
中枢敏感化被认为是纤维肌痛症背后的核心机制,其表现为中枢神经系统的兴奋性增加,从而导致疼痛抑制功能受损。理解这些核心机制,是后续探讨肠道菌群如何影响疼痛的关键。
疼痛信号为什么会被放大?
中枢敏化一旦形成,身体就像一个报警器,灵敏度调到很高,一点点刺激就痛。
编辑
部分纤维疼痛患者还有同一个隐藏问题:感觉能力下降,本体觉被抑制。
本体觉,就是你对身体位置、肌肉状态的内在感知。长期中枢敏化,会一步步让人摸不清自己的身体、感知变得破碎麻木、越来越难区分“紧张”和“疼痛”。
最终形成一个死循环:
编辑
这一切,都和一个关键脑区密切相关——中脑。中脑是:疼痛中枢、泌尿中枢、焦虑与情绪中枢、多巴胺分泌中枢、高级交感神经中枢。
中脑长期过度兴奋,后果是:
谷氨酸、NMDA受体与疼痛敏感性
在分子层面,中枢敏化与兴奋性和抑制性神经信号之间的平衡改变有关,其中谷氨酸-NMDA受体通路受到较多关注。
谷氨酸是中枢神经系统重要的兴奋性神经递质。当谷氨酸能神经传递持续增强时,NMDA受体活性增加,可促进神经元兴奋和疼痛信号传递,使神经系统更容易对后续刺激产生较强反应。关于谷氨酸,谷禾之前的文章有详细阐述:
兴奋神经递质——谷氨酸与大脑健康
那么意味着如果我们可以监测到神经递质,例如抑制性神经递质GABA或兴奋神经递质谷氨酸等的异常,或通过干预神经递质的平衡状态,来缓解中枢敏化及其敏化带来的一系列慢性疼痛和纤维肌痛。
编辑
<来源:谷禾肠道菌群检测数据库>
纤维肌痛患者脑脊液和脑组织中的谷氨酸浓度升高,加上 P 物质水平上升以及血脑屏障通透性改变,都可能加剧疼痛敏感性并导致中枢疼痛的放大效应。
注:P物质(Substance P)是一种神经肽,主要参与疼痛信号传递和炎症反应。
饮食可能从哪里介入?
膳食因素也可能通过多酚、Omega-3 脂肪酸及其他生物活性营养素所具有的抗炎和抗氧化作用来影响这些机制。
例如镁可以通过调节 NMDA 受体活性来降低神经细胞的过度兴奋,而Omega-3 脂肪酸则可通过改善神经元膜功能及谷氨酸的转运来维持谷氨酸能系统的稳态。
尽管直接的临床证据仍较为有限,但这些机制共同可能有助于调控纤维肌痛中的神经炎症反应与中枢敏感化现象。
神经炎症
神经炎症已被认为是纤维肌痛病理生理过程中重要的致病因素,神经炎症也是多种神经系统疾病的重要发病机制之一,越来越多的证据表明中枢神经系统内的神经免疫反应存在紊乱。
神经炎症:神经系统疾病的共同病理基础与治疗新方向
2025年发表在《Science》杂志发表了一篇由首都医科大学施福东教授与加拿大卡尔加里大学 V. Wee Yong 教授共同撰写的综述,系统阐述了神经炎症在多发性硬化、卒中、阿尔茨海默病及帕金森病等疾病中的核心作用,并基于最新研究提出了靶向免疫调节的治疗策略。
编辑
神经炎症是如何发生的?
神经炎症的本质是中枢神经系统(CNS)内免疫细胞的异常激活与外周免疫细胞的浸润。当 CNS 遭遇损伤或蛋白异常聚集时,小胶质细胞与星形胶质细胞会被危险相关分子模式(DAMPs)激活,同时外周 T 细胞、单核细胞等通过血脑屏障侵入,形成 “炎症级联反应”。
尽管这一过程初始旨在清除病原体或修复损伤,但其过度激活会释放蛋白酶、细胞因子及活性氧(ROS),反向推动神经退行性变,形成难以阻断的恶性循环。
纤维肌痛中发现了哪些神经炎症信号?
正电子发射断层扫描研究显示,纤维肌痛患者存在胶质细胞活化现象,而 IL-8等趋化因子的水平升高则表明神经元与胶质细胞之间的相互作用增强,进而导致疼痛敏感度的上升。
纤维肌痛患者体内的活化小胶质细胞会释放多种促炎细胞因子,包括肿瘤坏死因子-α(TNF-α)和IL-1β,这些因子会显著加剧疼痛并促进神经炎症反应。
不过,PET 成像的结果应谨慎解读,因为它仅能提供小胶质细胞活化的间接证据,还需通过进一步研究加以验证。
此外,IL-1、IL-6 以及TNF-α等细胞因子已知会影响疼痛处理机制,可能在维持纤维肌痛患者的中枢敏感化状态及慢性疼痛方面发挥作用。
饮食可能从哪些环节介入?
现有证据表明,神经炎症在纤维肌痛的持续存在与病情进展中起着重要作用。因此,富含多酚、Omega-3 脂肪酸及其他植物来源抗氧化剂的抗炎饮食方案可能有助于调节这些神经炎症通路,从而减轻症状的严重程度。
氧化应激与线粒体功能障碍
氧化应激如何放大疼痛与疲劳?
谷禾以前写过大脑退行疾病的两个重要诱因:氧化应激和肠道失衡,今天不赘述了,感兴趣的可以点击了解下。
编辑
本文要讨论的纤维肌痛与氧化应激及线粒体功能障碍密切相关,后者表现为线粒体结构异常、酶活性降低以及 ATP 生成障碍。较高的活性氧水平及其造成的氧化损伤被认为会加剧纤维肌痛患者的疼痛、疲劳感,并促进炎症反应的发生。
抗氧化营养素的潜在作用
营养干预措施显示出缓解这些病理变化的潜力。维生素 C 和 E 等抗氧化剂以及多酚类物质可减少氧化损伤,而镁和辅酶 Q10则有助于维持线粒体功能。辅酶 Q10 在线粒体 ATP 合成中起着关键作用,同时也是一种强效的抗氧化剂,有望帮助减轻纤维肌痛症患者因氧化应激引起的症状。
此外,一些产品也开始逐渐进入医药市场以应对氧化应激,如阿魏酸 (FA),因为它具有抗氧化和抗炎特性。它通过增强 BDNF 和神经生长因子 (NGF) 以及一些具有抗炎特性的神经肽的产生来帮助神经干细胞增殖。
益生菌在抗氧化应激中的作用
2017 年的研究,益生菌如植物乳杆菌 NCIMB 8826、发酵乳杆菌 NCIMB 5221和动物双歧杆菌也能通过细菌 FA 酯酶大量产生阿魏酸。
由于其治疗效果,它在阿尔茨海默治疗中的应用越来越受到关注,用阿魏酸进行预处理已被证明可以减少 Aβ 原纤维并治疗阿尔茨海默小鼠的神经炎症。产生阿魏酸的益生菌通过清除 ROS 来抑制 β-淀粉样蛋白原纤维的形成和聚集。
自主神经系统功能紊乱
自主神经如何维持身体的平衡?
所谓自主神经功能失调或紊乱,并不是一个可以仅凭症状自行确诊的结论,更像是身体长期无法顺利在“工作”和“恢复”之间切换时,呈现出来的一组状态。
它提醒我们的不是某一处坏掉了,而是整个身体已经太久没有回到自己的节律里。
自主神经,是身体不用你指挥也会运行的系统
心脏跳动、呼吸调整、胃肠蠕动、血管收缩、体温变化和汗液分泌,大多不需要我们主动控制,是由自主神经系统默默协调。
它主要包括负责应对压力的交感神经,以及帮助身体休息、消化和恢复的副交感神经。
编辑
健康并不意味着永远放松,而是能够灵活切换,需要行动时调得起来,需要休息时退得下来。
当身体长期停留在“高警觉”状态
很多现代人的问题,恰恰不是交感神经偶尔兴奋,而是兴奋以后迟迟无法退出;副交感神经不是完全“失活”,而是越来越难获得足够的恢复时间。
自主神经紊乱的人,最典型的状态不是忙,而是停不下来。身体坐在沙发上,脑子还在处理工作;人已经躺到床上,下颌、肩膀和腹部依然暗暗用力;明明没有危险,心里却总有一种事情还没做完的紧迫感。
这种紧张持续久了,身体会把警觉误认为正常。
长期失衡会影响多个身体系统
呼吸逐渐停留在胸口,横膈膜活动减少,肩颈开始帮助吸气;胃肠蠕动受到影响,饭后更容易胀堵;盆底、腹股沟和下颌持续收紧,睡眠也会停留在较浅的层次。
很多人以为自己只是想得太多,实际上,头脑的忙乱往往只是身体高警觉的一个表现。
真正让人疲惫的,不只是白天做了多少事情,而是身体到了晚上仍然没有收到“今天已经结束”的信号。
纤维肌痛中的自主神经失衡
研究文献支持自主神经功能紊乱日益被视作纤维肌痛的重要特征。针对心率变异性所开展的研究表明,患者的交感神经系统活动增强,而副交感(迷走)神经系统活动则减弱(和上面的自主神经系统功能紊乱类似),这提示纤维肌痛患者存在自主神经调节异常。
心率变异性是一种用于无创评估自主神经系统功能的指标,已被广泛用于检测纤维肌痛患者的自主神经功能紊乱情况。
持续的交感-迷走神经失衡可能加剧纤维肌痛患者常见的疼痛、疲劳、睡眠障碍以及应激反应异常等问题。
肠道微生物群的改变
肠道菌群在与中枢神经系统功能及相关疾病的复杂联系,包括纤维肌痛,正通过“微生物群-脑-肠轴”(Microbiota-Gut-Brain Axis, MGBA)这一概念得到系统性的阐释。
纤维肌痛患者肠道微生物群变化
编辑
DOI: 10.1111/1756-185X.15021
脑-肠-菌轴构成了肠道微生物影响宿主疼痛感知和调控的主要生理基础。其主要通讯途径包括:
肠道菌群如何通过“脑-肠轴”影响纤维肌痛?
肠道菌群不仅帮助消化食物,也会通过“微生物群-脑-肠轴”与大脑持续交流。这一系统像一张双向通讯网,将肠道、免疫系统、内分泌系统和神经系统连接起来。因此,肠道菌群失衡可能不仅引起腹胀、排便异常,还可能参与焦虑、睡眠问题以及纤维疼痛的发生和维持。
编辑
doi: 10.13107/jocr.2026.v16.i04.7166
这种影响主要通过以下四条途径实现。
神经通路:迷走神经是肠道与大脑的“信息高速路”
迷走神经是人体重要的脑神经,连接脑干与胃肠道、心脏等器官。它的多数神经纤维负责把肠道信息传给大脑,因此可被看作肠道向大脑汇报情况的主要通道。
肠道菌群虽然不会直接接触大脑,但其代谢产物能刺激肠壁中的肠内分泌细胞。这些细胞会释放5-羟色胺、胰高血糖素样肽-1(GLP-1)、胆囊收缩素等信号分子,进一步激活迷走神经末梢。
例如,膳食纤维经菌群发酵后产生的短链脂肪酸,尤其是丁酸,可促进肠道释放5-羟色胺。该信号经迷走神经传至脑干的孤束核,再影响杏仁核、丘脑、岛叶和前扣带皮层等参与疼痛、情绪和内脏感觉的脑区。
就是说,肠道状态可影响人对疼痛的敏感程度,以及疼痛伴随的焦虑、恐惧和不适体验。
编辑
动物研究发现,部分益生菌能够减轻焦虑、抑郁样行为和内脏痛;而切断迷走神经后,这些作用会明显减弱甚至消失,提示迷走神经是菌群发挥部分神经调节作用的重要桥梁。
同时,这条通路也是双向的:压力、焦虑和睡眠不足等大脑信号,也可通过迷走神经影响肠道蠕动、消化液分泌、黏液层和肠道屏障,进而改变菌群生存环境,形成“情绪—肠道—疼痛”的循环。
免疫通路:菌群失调可引发低度炎症,放大疼痛
肠道是人体最大的免疫器官之一。正常菌群能帮助免疫系统学会区分“朋友”和“敌人”,既抵御病原体,又避免炎症反应过度。
编辑
doi.org/10.1111/1756-185X.15021
有些菌群及其代谢物能促进调节性T细胞(Treg)形成。Treg可产生IL-10等抗炎因子,相当于免疫系统的“刹车”,有助于限制炎症和疼痛。相反,某些菌群变化可能促进Th17细胞及IL-17等促炎通路活跃,增加炎症性疾病和疼痛的风险。
当菌群多样性下降、有益菌减少、潜在有害菌增加时,肠道屏障可能受损,出现俗称的“肠漏”。此时,细菌成分如脂多糖(LPS)更容易进入循环,激活免疫细胞,促使TNF-α、IL-1β、IL-6等炎症因子升高。
这些炎症因子会降低外周痛觉神经的激活阈值,使原本不太强的刺激也更容易感到疼痛,称为外周敏化。它们还可能影响脊髓和大脑中的小胶质细胞、星形胶质细胞,促进神经炎症和中枢敏化。中枢敏化会使疼痛持续更久、范围更广,也更难缓解,是许多慢性疼痛的重要机制。
内分泌通路:肠道菌群参与应激系统调节
下丘脑—垂体—肾上腺轴(HPA轴)是人体应对压力的核心系统,可调控皮质醇等应激激素。短期应激有助于应对危险,但长期压力会扰乱激素节律,增加焦虑、抑郁、睡眠障碍和慢性疼痛的风险。
研究发现,缺少正常肠道菌群的动物对应激的HPA轴反应往往过强;在早期补充特定菌群后,这种异常可得到一定改善。菌群代谢物、炎症反应及肠道屏障状态,都可能影响HPA轴活性。
因此,压力可通过神经和激素改变菌群;而菌群失调又可能通过炎症和代谢信号加重应激反应。长期处于这种循环中,机体更容易形成疼痛敏感状态。
代谢通路:菌群产生的小分子可影响免疫与神经功能
肠道菌群可把膳食纤维、胆汁酸和色氨酸等转化为具有生物活性的物质。
短链脂肪酸包括乙酸、丙酸和丁酸。它们既是肠道上皮细胞的重要能量来源,也能增强肠屏障、减少炎症、促进Treg细胞形成。丁酸还可能影响神经递质平衡、神经营养因子及小胶质细胞活性。动物实验提示,补充丁酸盐或增加膳食纤维,可能减轻炎症性疼痛和部分神经病理性疼痛。
编辑
次级胆汁酸由肠道菌群参与生成,可作用于TGR5等受体。相关信号与免疫调节、肠道功能和内脏痛调控有关。
菌群代谢的色氨酸代谢物也十分重要。菌群可影响5-羟色胺、犬尿氨酸和吲哚类物质的生成。这些分子与情绪、睡眠、免疫和疼痛均有关。例如,某些代谢失衡可能增强NMDA受体相关的兴奋性信号,促进神经炎症和疼痛敏化。
肠道菌群可通过迷走神经传递肠道信号,通过免疫系统调节炎症,通过HPA轴影响应激反应,并借助多种代谢物作用于肠道、神经和免疫细胞。菌群失调、肠屏障受损和慢性低度炎症,可能共同推动疼痛从短暂的保护性反应转变为持续性纤维肌痛。
– 尽管目前有些证据强度仍较有限 –
地中海饮食
地中海饮食以大量摄入水果、蔬菜、全谷物、豆类、坚果、橄榄油和鱼类为特点,其抗炎作用早已得到广泛认可。
遵循地中海饮食可通过减少促炎细胞因子的产生、改善免疫与代谢功能以及增强抗氧化能力来降低炎症水平。
橄榄油富含单不饱和脂肪酸和多酚,再加上鱼类中的ω-3 脂肪酸,能够通过调节炎症信号通路并减轻氧化应激,进一步发挥这些作用。
一项前瞻性、随机化、双盲、安慰剂对照的临床试验,共有 250 名女性参与,其中 206 名患有纤维肌痛,44 名为对照组。参与者在六个月的时间里分别摄入添加了特级初榨橄榄油的地中海式饮食或精炼橄榄油(作为安慰剂)。
结果表明,特定分类群随着特级初榨橄榄油的增加而显著增加,包括脆弱拟杆菌、Anaerotruncus colihominis;产丁酸菌如普拉梭菌、Roseburia intestinalis、Agathobacter。摄入特级初榨橄榄油可能有助于促进抗炎和代谢性细菌的生长。
对每组在各个时间点的治疗与安慰剂组的差异分析,以基线值为参考点
编辑
doi.org/10.3390/life16060894
这些特点与纤维肌痛的部分病理生理机制具有一定联系。纤维肌痛可能涉及低度炎症、氧化应激、免疫调节异常以及肠道菌群改变,因此,提高地中海饮食的依从性和整体饮食质量,可能有助于改善部分患者的症状和生活质量。
同时,地中海饮食富含植物性食物和膳食纤维,也可能通过影响肠道菌群及其代谢产物,为纤维肌痛的饮食干预提供另一条潜在途径。
植物性饮食
以植物性食物为主的饮食模式,包括素食和纯素食,富含纤维、抗氧化剂以及具有明确抗炎和抗氧化作用的植物化学物质。
其较高的纤维含量有助于提升肠道菌群的多样性并促进有益微生物代谢产物的生成,而较低的饱和脂肪含量则有助于减少全身性炎症。
植物营养素在调节纤维肌痛症相关病理机制中的作用
编辑
doi.org/10.3390/medicina61122211
此外,维生素 C 和 E、类胡萝卜素以及多酚等抗氧化剂能够减轻氧化应激,从而帮助纤维肌痛症患者改善代谢与免疫功能平衡。
在一项纳入 18 名纤维肌痛患者的非随机对照试验中,为期三个月的纯素食饮食干预显著改善了患者的疼痛程度、关节僵硬感、睡眠质量以及整体健康状况。
同样,一项针对纤维肌痛患者饮食干预措施的系统性综述也涵盖了多项临床研究,结果表明包括素食在内的多种饮食方式都能改善患者的疼痛、疲劳感、生活质量和心理状态等指标,但该类研究的整体证据质量被认为较低。
总体而言,植物性饮食干预似乎对纤维肌痛的治疗具有潜在益处,不过仍需更多设计严谨的研究来明确其长期疗效及作用机制。
低 FODMAP(可发酵寡糖、双糖、单糖及多元醇)饮食
低 FODMAP 饮食最初主要用于改善肠易激综合征相关症状,其核心是减少一类在小肠中吸收不完全、容易在肠道内发酵的短链碳水化合物。由于不少纤维肌痛患者同时存在腹胀、腹痛、排便异常等胃肠道问题,因此,这种饮食方式也逐渐受到纤维肌痛研究领域的关注。
目前认为,减少 FODMAP 的摄入可能首先改善患者的胃肠道症状,并通过肠道-大脑轴等途径间接影响疼痛、疲劳和整体生活状态。
编辑
初步研究显示,低 FODMAP 饮食干预不仅可改善纤维肌痛患者的胃肠道症状,还能提升其日常功能表现与生活质量。不过,仍需更多大规模研究来验证这些发现。
需要注意的是,低 FODMAP 饮食并不适合长期严格限制。由于它会减少多类食物的摄入,如果缺乏专业指导,可能降低饮食多样性,并增加营养摄入不足的风险。
因此,更合理的做法是在专业营养人员指导下短期实施,在症状改善后逐步重新引入不同食物,观察哪些食物容易诱发不适,最终建立更适合个人的长期饮食模式。
排除饮食与食物敏感性
纤维肌痛患者常常报告在摄入某些食物后会出现症状加重的情况,这促使人们越来越关注在纤维肌痛管理中运用排除性饮食疗法。
观察性研究显示,许多纤维肌痛患者在确诊后会改变自己的饮食习惯,通常会避免食用麸质和乳糖等物质,以此来减轻症状的严重程度。
多项临床研究评估了针对纤维肌痛症患者的各种饮食干预措施,包括无麸质饮食和低 FODMAP 饮食。一项系统评价表明,这些饮食方案能够改善疼痛、疲劳及睡眠障碍等症状。
注:不同研究在干预方式、样本量和评价指标上差异较大,因此目前整体证据仍然有限。
这也意味着,排除性饮食并不适合所有纤维肌痛患者,更不建议在没有明确原因的情况下长期大量限制食物。哪些人更容易获益、应该排除哪些食物,以及长期效果如何,目前仍需要更多高质量研究进一步明确。
生酮饮食
生酮饮食通过大幅减少碳水化合物摄入,使机体进入营养性酮症状态,并产生包括β-羟基丁酸在内的多种酮体。除了作为替代能源外,β-羟基丁酸还可能参与炎症调节,例如抑制 NLRP3 炎性小体的活化,从而减少部分促炎细胞因子的释放。
编辑
目前,生酮饮食在纤维肌痛中的研究仍处于较早阶段。一项关于极低热量生酮饮食的初步研究发现,部分患者在干预后疾病严重程度、生活质量、情绪状态和睡眠质量有所改善,而且这些变化并不完全依赖于体重下降。这提示,酮症本身可能通过代谢或神经生物学途径影响纤维肌痛相关症状。
不过,现有研究数量较少、样本量有限,因此还不能据此认为生酮饮食已经被证实能够有效治疗纤维肌痛。此外,生酮饮食限制性较强,长期坚持并不容易。如果饮食搭配不合理,还可能降低食物多样性并增加部分营养素摄入不足的风险。
虽然现有短期研究提示其耐受性总体尚可,但在纤维肌痛患者中的长期安全性、实际效果以及可持续性仍需要更多高质量研究进一步明确。
多酚与抗氧化剂
浆果、茶、咖啡、巧克力、橄榄油等食物富含多酚类物质。
这类成分具有一定的抗氧化和抗炎作用,能够帮助清除过量活性氧、减轻氧化应激,而氧化应激正是纤维肌痛可能涉及的重要病理机制之一。
编辑
此外,多酚还可能通过影响小胶质细胞活性以及神经-免疫相互作用,参与神经炎症和疼痛敏感性的调节。因此,从机制上看,富含多酚的饮食可能对纤维肌痛患者具有一定的辅助价值。
除了从食物中获取多酚外,维生素 C、维生素 E 和 N-乙酰半胱氨酸等抗氧化成分也受到一定关注。这些物质能够参与机体抗氧化防御,例如帮助维持谷胱甘肽等抗氧化系统的功能,从而减轻活性氧积累带来的氧化损伤。
不过,这类干预的实际效果可能因人而异。多酚和其他抗氧化成分在人体内的吸收、生物利用度以及肠道菌群对其代谢方式都存在差异,再加上个体自身代谢状态不同,因此并不是所有患者都会获得相同的效果。
总体来看,多酚和抗氧化营养素更适合作为纤维肌痛综合管理中的辅助干预方向,其具体疗效仍需要更多高质量研究进一步明确。
辅酶 Q10(CoQ10)
辅酶 Q10 通过促进呼吸链中的电子传递,对线粒体的能量生成起着关键作用,进而有助于 ATP 的合成。此外,辅酶 Q10 还具有很强的抗氧化性能,能够帮助减少活性氧和氧化应激,而这两者都与纤维肌痛症的病理生理过程密切相关。
编辑
在一项随机双盲安慰剂对照试验中,每日摄入 300 毫克 CoQ10 并持续 40 天,可显著减轻与纤维肌痛相关的症状,包括疼痛、疲劳以及压痛点,同时还能改善线粒体功能相关指标及炎症生物标志物水平。
此前采用相同剂量进行长达三个月的临床观察也发现临床症状有所改善,这表明在短期至中期内使用 CoQ10 可能具有治疗作用。不过,最佳治疗时长以及长期疗效与安全性仍不确定,需通过更大规模的临床试验来进一步验证。
镁
镁补充剂在缓解纤维肌痛患者的疼痛与压力方面显示出潜在的益处。
一项随机双盲临床试验表明,服用镁补充剂后,患者的疼痛程度显著降低,压力水平也有所改善。不过,目前不同研究得到的结果并不完全一致,而且患者的基础镁水平、压力程度、镁制剂种类以及补充剂量等因素,都可能影响最终效果。
因此,现阶段更适合将镁视为纤维肌痛综合管理中的一种潜在辅助干预,其适用人群、最佳剂量以及不同镁制剂之间的差异,仍需要更多高质量研究进一步明确。
中草药
✦肝郁气滞证
【症状】
肌肉走窜胀痛,焦虑易怒,胸胁胀闷,寐差多梦,或脘闷嗳气,腹痛腹泻,不思饮食,疲乏无力,大便不调,或疼痛夜甚,胸胁刺痛,月经不调,经色紫暗有块;舌暗淡,舌苔白或腻,脉弦细。
◆【相关中药】
柴胡、黄芩、当归、白芍、川芎、白术、茯苓、半夏、防风、威灵仙、元胡、枳壳、陈皮、香附、元胡索、郁金、桂枝等,如兼气滞血瘀,则酌情增加桃仁、红花、川牛膝、乳香、没药等。
✦ 寒湿痹阻证
【症状】
肌肉酸胀、疼痛、僵硬,四肢重着无力,每遇寒冷痛,遇温痛减,舌淡苔白腻,脉沉细。
◆【相关中药】
附子、当归、黄芪、羌活、独活、防风、防己、细辛、桂枝、蜈蚣等。
✦ 痰热扰心证
【症状】
肌肉疼痛、拒按,惊悸不安,口苦心烦,头痛失眠,渴喜冷饮,性情急躁,反复梦魇,恶心纳呆,舌质红,苔黄腻,脉弦滑或弦滑数。
◆【相关中药】
半夏、竹茹、枳实、橘皮、茯苓、胆南星、黄芩、龙骨、牡蛎、穿山龙、忍冬藤、地龙等。
✦ 肝肾不足证
【症状】
肌肉酸痛、无力,腰膝疲软,劳累加重,筋缩,手足不遂;或畏寒肢冷,尿频清长,夜尿增多;或肢体麻木,失眠健忘,月经量少;舌淡苔白,脉沉或弱。
◆【相关中药】
熟地、山药、山茱萸、菟丝子、鹿角胶、杜伸、牛膝、党参、当归、川芎、茯苓、白芍、桂枝、秦艽、防风、细辛、木瓜、伸筋草、乌梢蛇等;偏于阴虚者,加龟板、枸杞子等;偏于阳虚者,加制附子、肉桂等。
以上资料来自《中国纤维肌痛综合征诊疗指南》DOI: 10.3760/cma.j.cn112138-20220602-00426. 注意中医用药需结合患者具体症状、证候及个体情况进行辨证施治,不建议自行照方服用,具体用药请咨询专业医师。
运 动
根据中华中医医学会2023年发出的纤维肌痛的诊疗指南,其特别强调推荐纤维肌痛患者应进行合理的运动锻炼,首选单一的运动形式,根据患者健康情况及个人喜好可采取有氧运动、力量训练、传统功法(太极拳、八段锦、六字诀、五禽戏)、瑜伽、拉伸运动、水中运动;疗程至少3个月。
编辑
此外,我们查询文件也发现一项纳入37篇文献的系统性综述显示,有氧运动、力量训练、功法、太极、瑜伽、拉伸运动、水中运动(如泳池训练、水疗法或水运动疗法)等单一运动形式可明显改善患者的躯体疼痛、认知障碍和生活质量,抑郁、焦虑和睡眠症状得到轻度和中度改善。此外,力量训练、功法、有氧运动均可缓解疲劳。
一项纳入13篇RCT的meta分析显示,与对照组相比,练习太极拳、八段锦、六字诀、五禽戏等功法(中位练习时长为60min/次,中位疗程为12周)4-7周可改善患者的疼痛、疲劳、抑郁、睡眠障碍和生活质量,对疼痛、生活质量和睡眠质量的疗效可维持至24-52周。
为保证疗效,推荐运动锻炼的疗程不应短于3个月。
运动+心里干预
该指南还推荐对有接受更多非药物疗法治疗意愿的纤维肌痛患者,在已有运动锻炼的基础上,可结合患者的具体情况制定个体化方案,选择再联合另一种运动疗法或心理治疗进行干预。
一项纳入21篇RCT(n=1253)的meta分析证实,联合运动(包括至少两种:有氧运动、力量训练和灵敏性训练)可以改善疼痛、僵硬症状以及FM相关生活质量、疲劳,并提高躯体功能,其疗效可持续6-52周,甚至更久。
一项纳入15篇研究(n=1751)的网状meta分析证实,运动联合心理治疗(至少一种运动疗法联合至少一种心理疗法)在改善疼痛和生活质量方面显示出了一定疗效。
编辑
对以疼痛为主要表现的FMS患者,推荐行针刺治疗,亦可尝试采用引导想象与催眠治疗、经颅直流电/磁刺激、按摩疗法进行治疗。
一项纳入12篇研究(n=824)的meta分析显示,接受针刺治疗(20-30min每次,共1-28次)的患者疼痛和生活质量的改善程度均显著好于对照组,且疗效可以维持至8-48周。
一项纳入7篇研究(n=387)的meta分析证实,接受为期4-26周(累计治疗时长2-8h)的引导想象/催眠干预的患者疼痛VAS改善≥50%达标率和心理压力的改善均显著好于对照组;此外,对疲劳、疼痛、睡眠障碍都有一定作用,且可以维持到治疗结束后12周。
睡眠管理与药物支持
睡眠管理:重建夜晚修复系统
失眠或非恢复性睡眠是FMS最常见的症状之一。规律的作息习惯、睡前避免强光刺激、减少咖啡因摄入是基础干预。
对于中重度睡眠障碍者,在医生指导下可使用助眠药物进行短期干预,以打破“疼痛-失眠-更痛”的恶性循环。
药物治疗:针对疼痛机制的精准干预
虽然纤维肌痛患者不推荐长期依赖止痛药,但特定药物能有效调节中枢神经系统的异常状态:
需要强调的是,药物治疗应个体化,用药前需咨询医师。
纤维肌痛是一种多维度、多系统交织的、需要长期管理的慢性疼痛疾病,既不能简单归为“心理问题”,也不能视为“肌肉病”。它是一种中枢痛觉处理异常导致的“功能性疾病”,需要全社会更多理解与支持。
其干预通常需要饮食、运动、睡眠管理以及生活方式调整、药物等多种方式共同参与。相比之下,饮食干预是一种风险相对较低的策略。改善整体饮食质量、减少促炎饮食因素,并根据个体情况选择合适的营养干预,可能有助于缓解纤维肌痛患者部分症状并改善生活质量。
纤维肌痛并不是“想太多”或“忍一忍就会过去”的问题。持续的疼痛、疲劳、睡眠障碍和认知困扰都是真实存在的。患者及家属需要建立正确的疾病认知,并在专业医生指导下,根据自身症状制定个体化的长期管理方案。
未来,随着对“肠道菌群-免疫-神经系统”相互作用认识的不断深入,肠道菌群检测以及基于菌群特征的个体化饮食干预,可能为纤维肌痛的精准管理提供新的思路。
如果你身边有人常说
“我浑身都疼”“真的好累”
别急着说TA“太敏感”
理解、共情、科学治疗
才是我们真正该给的回应
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献:
中华医学会风湿病学分会。纤维肌痛综合症诊断和治疗指南。中华风湿病学杂志,2011,15(8):559-561。
Wolfe F,Clauw DJ,Fitzcharles MA等。用于临床和流行病学研究的纤维肌痛标准和严重程度量表:ACR纤维肌痛初步诊断标准的修改。风湿病杂志,2011,38(6):1113-1122。
Priya D, Shetty P, Shetty G B (July 10, 2026) Anti-inflammatory Diets for Chronic Pain Disorders With a Focus on Fibromyalgia: A Narrative Review. Cureus 18(7): e112395.
Bair MJ, Krebs EE (2020) Fibromyalgia. Ann Intern Med 172:ITC33.
Sarzi-Puttini P, Giorgi V, Marotto D, Atzeni F (2020) Fibromyalgia: an update on clinical characteristics, aetiopathogenesis and treatment. Nat Rev Rheumatol 16:645–660.
中华中医药学会风湿病分会;海峡两岸医药卫生交流协会风湿免疫病学专业委员会纤维肌痛综合征中西医研究学组;首都中西医结合风湿免疫病研究所 (2023) 中国纤维肌痛综合征诊疗指南. 中华内科杂志 62:129–146.
(2020) 纤维肌痛症发病机制的研究进展. 同济大学学报(医学版) 518–522
Macfarlane GJ, Kronisch C, Dean LE, et al (2017) EULAR revised recommendations for the management of fibromyalgia. Ann Rheum Dis 76:318–328.
Bhargava J, Goldin J: Fibromyalgia. StatPearls [Internet]. StatPearls Publishing, Treasure Island (FL); 2025.
Marques AP, Santo AS, Berssaneti AA, Matsutani LA, Yuan SL: Prevalence of fibromyalgia: literature review update. Rev Bras Reumatol Engl Ed. 2017, 57:356-63.
Misra DP, Sharma A, Dharmanand BG, Chandrashekara S: The epidemiology of rheumatic diseases in India. Indian J Rheumatol. 2024, 19:54-61.
Belviranlı M, Okudan N, Sezer T. Coenzyme Q10 improves redox homeostasis, mitochondrial biogenesis, and irisin signaling in fast- and slow-twitch muscle fibers in a reserpine-induced fibromyalgia-like myalgia model. Life Sci. 2026 Jun 1;394:124366.
Palma-Ordóñez JF, Moreno-Fernández AM, Ramírez-Tejero JA, Durán-González E, Martínez-Lara A, Cotán D. Implication of intestinal microbiota in the etiopathogenesis of fibromyalgia: A systematic review. Int J Rheum Dis. 2024 Jan;27(1):e15021.
García-Domínguez M: A comprehensive analysis of fibromyalgia and the role of the endogenous opioid system. Biomedicines. 2025, 13:10165.
谷禾健康
一个班里,戴眼镜的孩子越来越多;一些孩子虽然已经配了眼镜,近视度数仍然一年比一年增长。如今,近视已经成了许多儿童和青少年绕不开的问题。
对不少家长来说,视力检查单上的数字,几乎成了每个学期都要面对的一份成绩单。很多家长认为,孩子看书离得太近、写作业时间太长、电子屏幕看得太多、户外活动太少、遗传等。
这些因素当然都很重要。
但在现实中,同样是长时间学习和看屏幕,有些孩子近视出现得早、进展得快,有些孩子却相对稳定。除了用眼习惯和遗传,是不是还有其他因素影响着视力的进展?
研究表明,多数儿童近视不断加深,眼球前后径逐渐增加,也就是眼轴延长。眼轴变长并不是眼球被简单地撑大,而是涉及视网膜接收视觉信号、脉络膜血流变化、巩膜胶原降解与重建等一系列生物学过程。
也就是说,近视虽然发生在眼睛里,却不一定只由眼睛局部决定。炎症水平、营养和能量代谢、神经递质、心理压力以及血管状态,都可能改变视网膜、脉络膜和巩膜所处的内部环境。
既然眼轴增长可能受到这些全身信号调节,研究者便进一步追问:在眼睛之外,是否还存在某些上游因素,能够通过免疫、代谢或神经通路,影响眼球的生长?
一个看似离眼睛很远的地方——肠道菌群,开始进入研究者的视线。
看过谷禾文章的朋友都知道,肠道菌群能够通过血液循环、免疫信号、神经通路等,与大脑、皮肤、肺等远处器官发生联系。由此,研究者提出了“肠-眼轴”的概念。
人群研究发现,近视与非近视之间,可能存在某些肠道菌群组成和功能上的差异;队列观察到婴幼儿时期的抗生素暴露,可能与之后的近视风险存在轻度关联;动物实验则开始将肠道菌群及其代谢物、肠道屏障与眼轴增长、视网膜炎症及巩膜胶原联系起来。
本文带大家从另一个角度来了解儿童近视。梳理近视相关的菌群差异、抗生素暴露和动物实验,分析肠道屏障、炎症、微生物代谢物及神经信号可能怎样影响眼球生长。在此基础上,文章还将重点介绍目前围绕“肠-眼轴”开展的干预研究,包括饮食、益生菌、营养补充剂以及运动、睡眠和压力管理等。
看不清远处,只是近视表现出来的结果,在不少近视儿童的眼睛里,眼球正在悄悄发生结构变化——眼轴逐渐变长了。
编辑
大多数儿童和青少年最常见的变化就是,眼球前后径增长,也就是眼轴变长。
随着眼球被逐渐拉长,位于眼球后部的视网膜、脉络膜和巩膜也会受到影响。其中,包裹眼球的巩膜可能出现胶原减少、组织变薄和支撑力下降,使眼球更容易继续延长。
眼镜可以帮助光线重新聚焦,让孩子看清楚,却不能直接把已经增长的眼轴缩回去。尤其是近视发生得越早,留给眼轴继续生长的时间越长,发展为高度近视的风险也可能越高。
眼轴为什么会不断增长?
过去,人们更多从遗传、近距离用眼和户外光照等方面寻找原因。现在研究者逐渐发现,眼轴生长的背后,还涉及视网膜信号、脉络膜血流、神经递质、免疫炎症以及巩膜组织重塑等一系列生物学过程。
编辑
眼轴延长虽然发生在眼球内部,但参与这一过程的信号并不完全局限于眼睛。脉络膜血流和巩膜缺氧、视网膜多巴胺、炎症因子以及胶原代谢,都可能受到全身免疫和代谢状态影响。
这意味着,近视研究不能只观察眼球局部,还需要寻找可能影响这些通路的上游因素。
为什么研究者开始关注肠道菌群?
肠道菌群恰好能够参与炎症调节、神经递质前体代谢以及血管和能量代谢,因此,研究者提出了“肠-眼轴”这一概念。
儿童阶段尤其值得关注。
菌群发育和眼球生长发生在相近的生命阶段,研究者开始提出:肠道微生态的变化,会不会影响儿童眼睛的生长环境?
这种肠道与眼睛之间可能存在的联系,被称为“肠-眼轴”。目前研究认为,它可能涉及免疫炎症、微生物代谢物、肠道屏障和神经信号等多个方面。
近视和非近视的肠道菌群差异
一些人群研究观察到,近视儿童和非近视儿童的肠道菌群存在差异。
一项纳入80名6~15岁青少年的16S rRNA测序研究发现,近视组的菌群丰富度及β多样性与非近视组存在差异。具体而言,近视组拟杆菌门和变形菌门丰度升高,厚壁菌门丰度降低;在属水平上,Prevotella_9、Megamonas的相对丰度增加,而Blautia、Faecalibacterium、Bifidobacterium、Roseburia等菌属相对减少。
另一项纳入102名6~18岁青少年的研究发现,近视组肠道菌群丰富度总体降低,而且这种差异主要集中在男性。
与非近视男性相比,近视男性的Akkermansia、Alistipes、Oscillibacter、Oscillospira等菌属减少,而Veillonella、Sutterella增加。
女性中的菌群差异相对较少,主要表现为Paraprevotella减少和Erysipelotrichaceae_UCG-003增加。
婴幼儿期使用抗生素,后来近视风险略升高
抗生素在治疗细菌感染的同时,也可能影响肠道中的正常微生物。尤其是在婴幼儿时期,肠道菌群尚处于建立和成熟阶段,抗生素带来的影响可能持续一段时间。
2026年发表的一项队列研究,分析了3岁及以前接受全身抗生素治疗的儿童,并将他们与未接受抗生素治疗的儿童进行比较。
抗生素暴露组和未暴露组各有158582名儿童,总样本量达到317164人,平均随访时间约为7.4年。
随访期间,抗生素暴露组共有75302人被诊断为近视,未暴露组为72806人。
在进一步校正年龄、性别、城市化程度、收入和相关疾病后,研究发现,3岁前使用过抗生素的儿童,后来发生近视的相对风险约增加3%,校正风险比为1.03。
注:校正风险比1.03,表示抗生素暴露组的相对风险约增加3%,并不等于一个孩子使用抗生素后,近视概率就直接增加3个百分点。而且,这项研究纳入了超过31万人。样本量非常大时,即使两组之间的实际差异较小,也可能达到统计学显著。
男孩和女孩中都观察到了类似结果:女孩的校正风险比约为1.05,男孩约为1.04。研究绘制的累积发病曲线也显示,随着随访时间延长,抗生素暴露组的近视累积发生率略高于未暴露组。
两组儿童的近视累积发生曲线
编辑
DOI: 10.37796/2211-8039.1666
使用时间越长,风险就越高吗?
研究者还根据抗生素累计使用时间进行了分析,与没有抗生素暴露的儿童相比:
不同使用时间分组中的近视风险均有所升高,但并没有出现非常清晰的“使用时间越长,风险越高”的递增关系。
总的来说,这项研究提供了一条人群层面的线索:婴幼儿期抗生素暴露与之后的近视风险存在轻度关联。随着相关研究不断增加,科学家开始进一步追问:肠道微生态的变化,究竟可能通过哪些途径影响眼球发育?
这就要从肠道菌群产生的代谢物、免疫信号和神经调节说起。
目前来看,肠-眼轴可能主要通过以下几条路径发挥作用。
肠道屏障受损,炎症信号可能进入全身
肠道上皮细胞、细胞之间的紧密连接、黏液层和正常菌群,共同构成一道屏障,防止大量细菌成分进入血液。
当菌群明显失衡时,肠道屏障也可能受到影响。一些细菌成分和炎症信号更容易进入循环,引发持续、低水平的全身炎症。
这种炎症不一定会让孩子发热或明显不舒服,却可能影响远处组织,包括眼睛。
2026年一项高近视小鼠研究发现,高近视小鼠不仅出现了巩膜变薄、胶原减少,同时还存在肠道菌群失衡和肠道屏障损伤。
研究者抑制肠上皮细胞中的Kdm2a后,小鼠的菌群结构、结肠形态和肠道屏障有所恢复,炎症相关变化减轻,近视进展也受到了一定抑制。
菌群代谢物,连接肠道与眼睛的信使
肠道菌群在分解食物时,会产生大量代谢物。其中包括短链脂肪酸、胆汁酸衍生物、色氨酸代谢物以及其他小分子。这些物质不仅参与消化,还可能进入血液,调节免疫、炎症和组织代谢。
短链脂肪酸:帮助维持屏障和免疫平衡
膳食纤维进入结肠后,可以被部分肠道细菌发酵,产生乙酸、丙酸和丁酸等短链脂肪酸。短链脂肪酸可以为肠上皮细胞提供能量,帮助维持肠道屏障,并参与调节免疫反应和炎症水平。
在一项结合孟德尔随机化和生物学注释的研究中,Megamonas funiformis与较低的近视风险相关,(OR为0.979)。
进一步分析提示,巨单胞菌产生的短链脂肪酸,可能抑制PI3K-Akt/HDAC相关信号,而这些通路又与炎症调节、巩膜胶原和细胞外基质重塑有关。这为“特定菌群—代谢物—巩膜变化”提供了一条可能的机制线索。
色氨酸代谢物:可能影响巩膜胶原
色氨酸进入肠道后,可以被部分细菌转化为吲哚类代谢物。其中,吲哚-3-乙酸(3-IAA)是目前近视研究中证据相对较完整的一种。
一项结合高近视患者分析、菌群移植和动物实验的研究发现,高近视人群中的Akkermansia显著减少,其丰度与眼轴长度呈负相关;与此同时,患者血浆中的3-IAA水平也明显降低,且Akk菌丰度与3-IAA水平呈正相关。
编辑
doi.org/10.1038/s41421-024-00709-5
研究者将健康人群的菌群移植给实验性近视小鼠后,小鼠血浆3-IAA水平升高,眼轴增长减缓,巩膜中的Ⅰ型胶原COL1A1也得到更好维持。直接给予小鼠3-IAA,同样减轻了近视性屈光变化和眼轴延长。
编辑
doi.org/10.1038/s41421-024-00709-5
进一步实验显示,3-IAA可能通过促进转录因子SP1与COL1A1基因结合,增加巩膜Ⅰ型胶原合成。
编辑
doi.org/10.1038/s41421-024-00709-5
胆汁酸和脂质代谢物:可能参与炎症和眼球生长
肠道菌群还参与胆汁酸和脂质代谢。胆汁酸不仅帮助消化脂肪,也能作为信号分子参与免疫、能量代谢和炎症调节。肠道菌群改变后,胆汁酸的种类和比例也可能发生变化。
2026年的一项炎症性近视大鼠研究发现,TGF-β2诱导近视后,大鼠出现眼轴延长、屈光度向近视方向变化,以及视网膜炎症信号升高。补充维生素D3后,近视进展和视网膜炎症有所减轻,同时肠道菌群结构和血清代谢物谱也发生了变化。
其中,研究观察到猪去氧胆酸(hyodeoxycholic acid,HDCA)以及多种咪唑类代谢物在不同实验组之间存在差异。
注:猪去氧胆酸是一种从猪胆汁中提取的天然胆烷酸。
胆汁酸和咪唑衍生物的组间差异
代谢产物与近视参数(眼轴长度和屈光度)间的相关系数
编辑
doi.org/10.3390/biom16070939
另一项孟德尔随机化研究,发现了一些具体菌群与脂质代谢物之间的联系。研究共分析了473种肠道微生物特征和233种代谢物。结果显示:
编辑
doi.org/10.1038/s41598-025-97722-9
在病理性近视中,研究还发现,较高的ω-6脂肪酸、亚油酸和多不饱和脂肪酸水平与风险升高相关。
这些发现提示,肠道菌群可能不是直接控制眼轴,而是先影响胆汁酸和脂质代谢,再通过炎症、血管状态和眼部组织代谢,间接参与近视进展。
神经递质:菌群可能间接影响视网膜信号
视网膜中的多巴胺,是调节眼球生长的重要信号之一;GABA等神经递质,也参与视觉信息的传递。
2024年一项比较近视与非近视人群肠道菌群的研究发现,近视人群中多种与多巴胺信号或GABA产生有关的细菌丰度存在差异,包括梭菌、瘤胃球菌、双歧杆菌、拟杆菌等。
其中,具有产生GABA能力的青春双歧杆菌在近视人群中相对更丰富,并且在稳定性近视者中高于进行性近视者。
这些结果提示,菌群与近视之间可能还存在神经信号方面的联系。
前面讲到,肠道菌群可能通过炎症、代谢物和神经递质等影响眼睛。但在孩子的日常生活中,近视不是孤立发生的。
长时间近距离用眼、频繁看屏幕、睡眠不足、学习压力常常同时出现。这些因素既可能直接影响眼睛,也可能改变神经内分泌、免疫状态和肠道微生态。
应激-近视通路的机制
编辑
doi.org/10.1016/j.neubiorev.2026.106668
各种近视危险因素(如遗传家族史、屏幕暴露、学业压力下的近距离工作、心理应激、环境因素等)可作为应激源,引起应激反应。
眼睛累了,并不等于眼轴正在变长
看完手机或写完作业后出现眼酸、眼胀、干涩、头痛或短暂视物模糊,通常属于用眼疲劳。
这类不适主要与持续近距离注视、调节紧张、眨眼减少和眼表干燥有关。而近视的核心变化是眼轴逐渐延长,两者不是同一个概念。
看屏幕时,眼睛首先发生的是眨眼变化
一项针对36名6~15岁儿童研究发现,连续使用手机玩游戏1小时后,儿童的眼干、疲劳和不适症状明显增加。
更直观的是,孩子的眨眼频率从每分钟约20.8次降至8.9次,眨眼间隔也明显延长。这种变化在开始使用手机后的第一分钟就已经出现,并持续了整个实验过程。
眨眼相当于不断为眼表补充和铺平泪膜。眨眼减少后,眼球表面暴露时间变长,孩子就更容易出现干涩、异物感和疲劳。
干眼研究,为菌群和眼部关联提供旁证
虽然屏幕引起的眼疲劳与菌群之间缺乏直接证据,但干眼研究已经发现,肠道微生态可能通过免疫和代谢信号影响泪腺、角膜和结膜。
部分临床研究观察到,免疫相关干眼患者存在肠道菌群改变;动物实验中,抗生素引起的菌群紊乱还可能加重眼表炎症和屏障损伤。
注:这些证据目前主要集中在干燥综合征等免疫相关干眼。对于屏幕使用导致的蒸发性干眼、普通眼疲劳或环境相关干眼,肠道菌群的证据仍然比较间接。
睡得早晚,可能与儿童菌群组成有关
2024年一项研究纳入88名2~14岁的健康儿童,根据入睡时间分为21:30以前入睡和21:30以后入睡两组。结果发现,两组儿童的肠道菌群组成和多样性存在差异。
在较早入睡的儿童中,研究观察到以下细菌的相对丰度较高:
这项研究说明,儿童的作息时间可能与菌群状态有关。
研究显示,目前儿童睡眠研究涉及睡眠时长、质量、时间和效率等多个方面,但不同研究之间差异较大。睡眠可能更像一个共同背景因素:睡得晚的孩子可能同时看屏幕更久、户外活动更少、生活节律更不规律。这些因素又可能共同影响眼睛和肠道。
长期压力,可能同时影响肠道和眼睛
长期学习压力、睡眠不足、持续紧张,会反复激活下丘脑-垂体-肾上腺轴和交感神经系统,使糖皮质激素、肾上腺素和去甲肾上腺素等应激信号持续升高。
这些变化不仅作用于大脑和眼睛,也会影响肠道。
压力会影响肠道状态
长期应激可能改变肠道蠕动、分泌和免疫环境,同时削弱肠道屏障,使肠道微生态更容易受到扰动。
肠道屏障受损后,脂多糖等细菌成分可能更容易进入血液;菌群产生的短链脂肪酸、吲哚类等代谢信号也可能发生变化。它们如何影响眼睛,前文已经分别介绍过。
肠-脑-眼轴功能障碍在近视中的作用
编辑
doi.org/10.1016/j.neubiorev.2026.106668
慢性应激反应导致肠道菌群失调和肠漏,从而导致代谢物和内毒素进入血液并到达眼睛,引发氧化应激和炎症反应。肠-脑-眼轴还通过下丘脑-垂体-肾上腺轴(HPA)、肠神经系统(ENS)和迷走神经(VN)通路参与眼部神经内分泌、免疫和代谢调节,上调脂多糖(LPS)、活性氧(ROS)和细胞因子,下调短链脂肪酸(SCFA)、吲哚-3-乙酸(3-IAA)、多巴胺(DA)等,导致眼轴伸长。
交感神经兴奋,也可能直接影响眼睛
长期交感神经兴奋可能使脉络膜血管收缩、血流下降。
一项为期1年的纵向研究纳入了273名小学二、三年级学生。研究人员检测晨尿中的肾上腺素、去甲肾上腺素和多巴胺,以评估交感神经系统的活跃程度。
结果发现,交感神经活动越强,儿童的脉络膜往往越薄,眼轴增长也越快。其中,尿液中每增加1 μg/L去甲肾上腺素,眼轴延长速度约增加0.002毫米。进一步分析提示,交感神经活动可能部分通过脉络膜变薄,与眼轴增长发生联系。
这提示,压力可能一边影响肠道屏障和微生态,另一边直接影响眼部血流和眼球生长。
自主神经功能紊乱在近视中的作用
编辑
doi.org/10.1016/j.neubiorev.2026.106668
男孩象征着由SNS介导的“战斗或逃跑”反应,而女孩象征着由PNS介导的“休息和消化”状态。慢性应激反应导致ANS功能紊乱,激活SNS并抑制PNS,从而导致代谢加速和恢复不足。NE和NPY升高,Ach、VIP和NO降低,导致脉络膜缺氧、眼压升高和调节滞后。这些变化激活了信号通路(例如H3K18/Notch1、F-Actin/YAP/TAZ、ON/OFF-BC等),导致COL-1、PGs/GAGs减少,从而引起眼轴延长。
因此,压力可能通过两条路径与近视产生联系:
压力通过肠道推动近视,目前仍是一种具有机制依据、但尚待临床研究证实的假说。
总之,屏幕使用对眼睛最直接的影响,是近距离用眼增加、眨眼减少和眼表不适;睡眠紊乱和长期压力,则可能同时影响自主神经、激素水平、肠道屏障和微生态状态。因此,肠道菌群是生活方式与眼健康之间的一个调节环节。
现有研究已经尝试从菌群、微生物代谢物、肠道屏障、神经调节、炎症、氧化应激等多个方向进行干预,但大部分证据来自动物实验或机制研究。
饮食模式
饮食模式:均衡地摄入肉蛋白和蔬果类
一项研究使用了中国儿童营养与健康调查的数据,覆盖14个省份、28个县区。最终纳入了7423名10-11岁儿童,其中1746人报告有近视,近视比例为23.5%。
研究人员用一份包含72种食物的食物频率问卷,了解儿童过去一个月的日常饮食,并将食物归为11大类,包括谷薯类、豆类、蔬菜、水果、奶类、肉类、水产品、蛋类、零食和饮料等。随后通过主成分分析,归纳出几种典型饮食模式。
编辑
研究发现,更符合饮食模式A和饮食模式C的儿童,近视的可能性相对较低。
在调整年龄、性别、城乡、南北地区、营养状况、身体活动、屏幕时间和睡眠等因素后:
饮食模式A依从性最高组,相比最低组近视检出可能性较低,OR为0.78(95% CI:0.66~0.92)。
饮食模式C依从性最高组,相比最低组近视检出可能性较低,OR为0.68(95% CI:0.58~0.80)。
作者因此认为,较均衡地摄入肉、水产品、奶、蛋、豆类,同时摄入蔬菜、水果和谷薯类,可能与较低的儿童近视风险相关。
作者推测,这些饮食模式可能通过动物蛋白、维生素、矿物质、叶黄素、花青素及抗氧化成分等,对眼球生长、视网膜功能或睫状肌状态产生影响。模式A和模式C的食物构成,也与“江南饮食”或地中海式健康饮食有一定相似性。
地中海饮食
地中海饮食以蔬菜、水果、豆类、全谷物、坚果、鱼类、橄榄油为主要组成。
关于地中海饮食,以下是干眼相关研究提供的一些旁证。
干眼相关研究提出,地中海饮食中的膳食纤维、多酚、ω-3脂肪酸、维生素和抗氧化食物,可能通过降低氧化应激和炎症、改善脂质代谢、支持泪膜脂质层,并调节肠道菌群代谢,影响眼表稳态。
2025年的干燥综合征研究。研究纳入114名干燥综合征患者,地中海饮食依从性评分越高,患者报告的眼干症状越轻,饮食评分与OSDI呈较强负相关,相关系数为−0.73;其中,多不饱和脂肪酸摄入相关评分与OSDI的相关系数为−0.67。
全谷物:可以作为饮食模式的补充
有人提出,经历快速经济转型的群体饮食结构的改变,可能是近视患病率在代际间快速增长的部分原因。
在对586名 6-12 岁儿童进行的横断面流行病学研究中,全谷物摄入量(>50%)是预防近视的独立保护因素,尤其是在 9-12 岁的儿童中。
哪些饮食因素可能不利:高糖、高盐
来自中国 11-14 岁儿童的证据表明,甜食(如蛋糕、蜜饯、糖果、巧克力和冰淇淋)的摄入与较高的近视患病率有关。
Kim和Choi分析了韩国5~12岁儿童的营养摄入与近视情况。结果显示,碳水化合物、蛋白质、磷、铁、钾和钠摄入较高,均与较高的近视可能性相关。其中,钠摄入过量的儿童,近视可能性较高。
编辑
doi: 10.3390/epidemiologia5010003
对于盐与眼轴之间的联系,Brown等提出了一种可能机制:较多的氯化钠摄入可能提高视网膜细胞膜的离子通透性,增加玻璃体内外的渗透梯度,使更多液体进入玻璃体。长期的液体潴留可能增加眼球组织承受的机械牵拉,并参与眼轴延长。
宏量营养素
脂肪:摄入适量,合理的结构比例
脂肪是细胞膜、视网膜和神经组织的重要组成部分,也参与脂溶性维生素吸收和炎症介质合成。
香港儿童研究发现,较低的总脂肪和胆固醇摄入与之后发生近视有关;韩国研究也观察到,近视儿童的总脂肪、ω-3脂肪酸和视黄醇摄入低于正视或远视儿童。
但脂肪并不是摄入越多越好。
新加坡儿童近视危险因素队列中分析了851名儿童的膳食摄入和眼球生物学参数。多种营养素中,饱和脂肪和胆固醇摄入较高,与较长的眼轴存在正相关。
饱和脂肪和胆固醇可能通过脂质代谢、低度炎症、血管功能及脉络膜循环影响眼球生长环境。
因此,需要区分:
编辑
ω-3脂肪酸
ω-3多不饱和脂肪酸,主要包括EPA和DHA。
动物研究显示,每日补充含300 mg DHA和60 mg EPA的ω-3脂肪酸,可以减轻豚鼠和小鼠的实验性近视。研究者认为,ω-3脂肪酸可能改善脉络膜血流、缓解眼部缺氧,并减少与巩膜重塑有关的异常信号。
在人群研究中,口服ω-3脂肪酸与脉络膜血流改善有关。另一项针对12~19岁人群的研究发现,当膳食EPA摄入达到每1000千卡至少11 mg时,高度近视的可能性较低。EPA可能通过促进血管平滑肌舒张和血管扩张,改善眼部组织灌注。
婴幼儿时期的脂肪酸来源也可能产生影响。研究发现,母乳中含有较多DHA和花生四烯酸等多不饱和脂肪酸,母乳喂养的新生儿之后发生近视的风险相对较低。
注:动物实验中使用的“300 mg DHA+60 mg EPA”是针对实验动物的研究剂量,不能直接作为儿童补充剂量。对于儿童来说,优先从深海鱼等日常食物中获得,更符合膳食干预的逻辑。
编辑
ω-6脂肪酸
ω-6脂肪酸同样属于多不饱和脂肪酸,广泛存在于多种植物油和坚果中。这并不意味着应当单独大量补充ω-6脂肪酸。ω-6脂肪酸可以参与细胞膜组成和生长发育,但其部分代谢产物也可能参与炎症反应。
它对眼球发育的影响可能与ω-3和ω-6之间的比例、脂肪来源以及整体饮食背景有关,而不能只看一种脂肪酸的绝对摄入量。
蛋白质:避免摄入不足和摄入过多
香港一项包含92名儿童的研究也发现,7岁时总能量、蛋白质、脂肪和胆固醇摄入较低的儿童,后来更容易发生近视。
与这些结果相反,部分中国和韩国研究发现,近视儿童的蛋白质摄入反而较高。新加坡儿童研究则没有发现蛋白质摄入与近视之间存在明显关系。
这些差异说明,蛋白质的影响可能取决于儿童原本的营养状况、蛋白质来源以及整体饮食结构。现阶段更合理的结论不是额外大量补充蛋白质,而是保证儿童能够从鱼虾、蛋类、奶类、豆类和适量瘦肉中获得充足而多样的优质蛋白。
编辑
总体能量摄入:营养不足和代谢过剩都值得关注
部分研究发现,总能量摄入较低的儿童更容易发生近视;但另一些研究则观察到,超重和肥胖儿童的近视或高度近视可能性更高。
在韩国儿童和青少年研究中,肥胖者发生高度近视的可能性高于正常体重者;女孩中的关联更明显。研究者推测,这可能与胰岛素抵抗、IGF-1信号和青春期生长有关。
中国儿童调查中,超重和肥胖儿童的近视检出率为26.0%,高于正常体重儿童的22.6%以及生长迟缓或消瘦儿童的18.3%。不过,这只是横断面差异,不能说明肥胖直接导致近视。
总的来说,这提示,儿童近视相关饮食不能走向两个极端:既要避免能量、蛋白质和必需脂肪酸摄入不足,也要减少高糖、高饱和脂肪和过量能量带来的肥胖及代谢压力。
营养补充剂和天然活性成分
维生素D:与户外活动、眼轴和炎症同时相关
维生素D是近视营养研究中讨论最多的成分之一。
一项儿童队列研究发现,血清25-羟维生素D,也就是25(OH)D水平,与眼轴长度和近视存在关联。
中国儿童研究也观察到,近视儿童与非近视儿童的血清25(OH)D水平存在差异;另有学生研究提出,维生素D结合日光暴露可能减缓近视进展。
维生素D包括维生素D3和维生素D2。维生素D3可以由皮肤接受日光照射后生成,也可以从脂肪含量较高的鱼类等食物中获得;维生素D2则主要来自酵母和部分真菌类食物。
编辑
不过,维生素D研究的结果并不完全一致。
Lingham等在澳大利亚中老年人中没有发现低25(OH)D水平与屈光状态有关;
Li等在中国儿童和青少年中也没有观察到低血清维生素D与近视之间的明确相关性。
这种差异可能是因为维生素D水平还同时反映户外时间、日照、饮食、体脂和生活方式。
肠道菌群检测可以从微生态角度评估部分维生素相关的代谢潜力,为了解影响视网膜功能、炎症调节和眼球发育的营养背景提供参考,帮助找到更值得优先调整的饮食和营养环节。
编辑
<来源:谷禾肠道菌群检测数据库>
维生素C:较高摄入与较低的近视检出率相关
一项营养调查显示,维生素C摄入较高的人群,近视检出可能性约为低摄入人群的0.62倍。
注:这项结果反映的是膳食摄入与近视之间的关联,并不是维生素C补充剂随机试验。水果和蔬菜中除了维生素C,还含有膳食纤维、多酚和类胡萝卜素,因此很难将观察到的关系完全归因于维生素C。
维生素A和视黄酸:缺乏会损伤视力
维生素A对视网膜感光功能非常重要,严重缺乏可以导致夜盲、角膜损伤,甚至儿童失明。
编辑
动物研究中,维生素A的活性代谢物视黄酸会参与眼球生长和近视相关信号调节。
对642名参与者进行了长期随访,分别在14岁、17岁和20岁评估维生素A摄入,并在20岁时进行眼科检查。结果没有发现维生素A摄入量与屈光状态之间存在显著关联。
这表明维持正常视觉功能与控制眼轴增长可能涉及不同的机制。
花青素:主要影响视疲劳和暂时性屈光变化
花青素是一类存在于黑加仑、蓝莓和其他深色浆果中的多酚成分。
编辑
在健康人群中研究了口服黑加仑花青素的作用。结果显示,补充花青素可以减轻长时间使用视觉显示终端后出现的暂时性屈光变化,并对暗适应产生一定改善作用。
蓝莓来源的花青素也表现出一定的睫状肌舒张作用,可能帮助缓解持续近距离用眼后出现的调节紧张。
注:这里观察到的主要是视疲劳和暂时性近视偏移,并不是由眼轴增长造成的结构性近视。
叶黄素和类胡萝卜素:有视网膜保护机制
叶黄素和玉米黄质广泛存在于菠菜、羽衣甘蓝等深绿色蔬菜中,是常见的膳食类胡萝卜素。相关研究显示,补充叶黄素可以改善视网膜光感受器功能和视觉表现。
编辑
人群研究还发现,血浆叶黄素水平较高的人群,近视发生可能性降低。
水果和蔬菜中还含有β-胡萝卜素等多种植物化学物质。
前面我们说到的以蔬菜、水果、谷物和薯类为主要特征的饮食模式与较低近视检出率相关,类胡萝卜素可能是其中的一类功能成分,但不能单独解释整体饮食模式的作用。
白藜芦醇:抑制炎症和巩膜组织重塑
白藜芦醇是一种存在于葡萄、浆果、花生等食物中的多酚。
编辑
Hsu等在视网膜色素上皮细胞和近视动物模型中研究了白藜芦醇的作用。与对照组相比,接受白藜芦醇干预的仓鼠眼轴相对较短。
进一步检测发现,白藜芦醇降低了多种与近视相关的炎症和组织重塑指标,包括:TGF-β;MMP-2;TNF-α;IL-6;IL-1β。
与此同时,巩膜中的Ⅰ型胶原表达增加。
这提示白藜芦醇可能通过抑制炎症、减少胶原降解并维持巩膜细胞外基质,减轻实验性近视进展。
槲皮素:抑制PERK-EIF2α信号通路,改善巩膜重塑
槲皮素是一种植物类黄酮,具有抗氧化和抗炎特性。
研究表明,槲皮素通过抑制PERK-EIF2α信号通路,降低细胞内钙离子和活性氧,改善巩膜重塑,从而减缓近视进展。
在小鼠模型中,槲皮素显著降低了屈光误差和眼轴长度,改善了巩膜厚度和胶原纤维排列。组织学分析显示,槲皮素增加了胶原I和TIMP-2的表达,同时降低了MMP-2水平,表明其在调节巩膜重塑方面的重要作用。
藏红花酸:从小鼠实验走向儿童试验
藏红花酸(crocetin)是一种天然的类胡萝卜素衍生物,存在于藏红花和栀子等植物中。
Mori等在镜片诱导近视小鼠中发现,口服藏红花酸可以抑制屈光度向近视方向偏移,并减轻眼轴延长。
研究者认为,藏红花酸可能通过改善脉络膜循环、增加眼部组织灌注和减轻缺氧信号,并调节EGR1等眼球生长信号发挥作用。
同一研究团队随后开展了儿童随机临床试验,探索膳食补充藏红花酸对近视控制的作用。这使藏红花酸成为少数既有动物实验、又已经进入儿童临床探索的天然活性成分之一。
69名6~12岁近视儿童,每日补充7.5 mg藏红花酸,持续24周。藏红花酸组的近视性屈光变化为−0.33 D,安慰剂组为−0.41 D;眼轴分别增长0.18 mm和0.21 mm。藏红花酸组还表现出较好的脉络膜厚度变化。
7-甲基黄嘌呤:可能直接影响巩膜胶原
7-甲基黄嘌呤(7-methylxanthine,7-MX)是咖啡因代谢过程中产生的一种黄嘌呤类物质。
相关研究提出,7-MX可能直接影响巩膜胶原含量和巩膜机械强度,也可能通过视网膜中的毒蕈碱型乙酰胆碱受体、多巴胺信号或其他神经递质通路调节眼球生长。
Mrugacz等将7-MX列为可能帮助控制近视进展的活性成分,但没有给出具体干预剂量、眼轴差值或儿童试验数据。
没食子酸:抗氧化和一氧化氮信号的机制线索
没食子酸是一种多酚类物质,存在于茶叶、草莓、香蕉、菠萝和柠檬等多种植物性食物中。
编辑
相关实验发现,没食子酸可以减少内皮型一氧化氮合酶eNOS降解,帮助维持一氧化氮信号。在晶状体上皮细胞实验中,将没食子酸加入功能性高分子载体后,可以提高细胞抵抗过氧化氢所致氧化损伤的能力。
近视动物研究还显示,直接抑制视网膜一氧化氮合酶能够影响实验性近视形成,说明NO-cGMP信号可能参与眼球生长。
肠道菌群检测可以评估与多巴胺、一氧化氮等物质相关的微生物代谢潜力。多巴胺参与视网膜信号和眼球生长调节;一氧化氮与血管舒缩、炎症及氧化应激有关。
编辑
<来源:谷禾肠道菌群检测数据库>
当相关功能明显偏高或偏低时,可以进一步结合炎症、氧化应激、运动、睡眠、饮食情况寻找可能的影响因素。
锌和铜:缺乏可能与近视有关
锌参与维生素A代谢,并在视网膜和脉络膜中保持较高浓度。但是研究方向不一致。
Fedor等在儿童和青少年中发现,近视组的平均血清锌水平低于非近视对照组。其他一些研究也得到了相似结果。
但Burke等没有发现锌水平与近视之间存在明显关联。
研究还发现,素食者的膳食锌摄入和血清锌水平往往低于非素食者;一项印度青年调查中,素食者的近视检出率也相对较高。
注:这类结果可能同时受到饮食结构、生活方式和社会经济因素影响。
铜的研究方向相对一致。
部分儿童和青少年研究发现,近视者的血清铜水平较低;
Cai等通过头发微量元素分析发现,铜水平与近视程度呈负相关,即铜水平越低,近视程度往往越高。
益生菌
益生菌可能通过维持肠道屏障、抑制炎症、产生短链脂肪酸、调节胆汁酸、神经递质等途径,影响眼部组织或心理状态。
植物乳杆菌EP21,可能减缓大鼠的眼轴增长
Lin等在两种大鼠近视模型中发现,每日口服植物乳杆菌EP21、连续干预21天,可以减轻眼轴增长和近视性屈光变化。
在形觉剥夺模型中,EP21使眼轴增长由0.39 ± 0.02 mm降至0.24 ± 0.05 mm;在TGF-β2诱导的炎症性近视模型中,眼轴增长由0.27 ± 0.02 mm降至0.20 ± 0.02 mm。
编辑
doi: 10.1080/19490976.2025.2534677
进一步研究显示,EP21可能通过抑制视网膜NF-κB、TNF-α、NLRP3和IL-1β等炎症信号,显著减少眼轴延长和屈光度偏移。
EP21分泌的膜囊泡能够穿越血-视网膜屏障并积聚于视网膜外节段,其携带的细菌miRNA通过调控炎症反应和泛素化通路(上调TNFAIP3、TNIP1、TAX1BP1)发挥抗近视作用。
乳杆菌科,可能参与高度近视相关焦虑
Mi等利用两步孟德尔随机化分析,研究高度近视、肠道菌群与焦虑之间的因果关系。研究纳入高度近视相关数据50,372人、焦虑数据21,761人。
两组独立分析合并后发现,高度近视与焦虑风险升高存在遗传因果关联,合并效应值为OR=8.76(95% CI:2.69~28.54)。
进一步的中介分析显示,高度近视可能导致肠道乳杆菌科(Lactobacillaceae)减少,而乳杆菌科减少又与焦虑风险升高有关。
具体来看,高度近视对乳杆菌科的效应值为β=-1.742;乳杆菌科对焦虑的效应值为β=-0.297。乳杆菌科在“高度近视导致焦虑”的过程中估计介导了约20.3%的效应。
编辑
doi.org/10.1007/s13167-024-00387-z
研究者还总结了多种乳杆菌调节情绪的实验线索。例如,罗伊氏乳杆菌NK33在动物研究中减轻了焦虑和抑郁样行为;干酪乳杆菌及其相关制剂可能通过调节菌群介导的炎症和脑源性神经营养因子BDNF表达,改善焦虑和抑郁样表现,Lactobacillus mucosae也显示出相似作用。
部分乳杆菌,尤其是短乳杆菌(Lactobacillus brevis),能够将L-谷氨酸转化为抑制性神经递质GABA,可能参与压力和焦虑调节。
另有动物研究发现,乳杆菌能够维持稳态IFN-γ水平,帮助机体抵抗环境应激。
接下来,我们来了解一些来自眼表和心理研究的旁证:干眼相关研究也提供了另一类证据。虽然没有证明益生菌能够减缓近视眼轴增长,但说明特定菌株可能与远端眼组织及心理状态有关联。
两歧双歧杆菌BB00(术后干眼)
在眼表研究中,一项双盲、随机、安慰剂对照试验,接受FS-LASIK手术的受试者连续30天服用两歧双歧杆菌BB00(Bifidobacterium bifidum BB00),每天剂量为2 × 10⁹CFU。
结果显示,补充BB00后,术后干眼发生率降低,眼表疾病指数OSDI、泪膜破裂时间FBUT和Schirmer I泪液分泌试验均有所改善。16S rRNA测序还显示,部分术后菌群变化出现逆转。
IRT5复合益生菌
在实验性干眼小鼠中发现,补充IRT5复合益生菌后,眼表损伤有所减轻,泪液分泌增加,同时伴随肠道菌群变化。
进一步发现,在自身免疫性干眼小鼠中,IRT5能够改变泪腺内多种免疫调节蛋白的表达,增强Treg相关调节并减少促炎反应,提示益生菌可能通过重塑泪腺免疫环境影响眼表。
合生元
双歧杆菌与低聚果糖组成的合生元
Chisari等研究了含双歧杆菌和低聚果糖的合生元。结果显示,部分干眼患者的眼表损伤和泪膜相关指标得到改善。
Tavakoli等随后开展的双盲随机试验也观察到,口服益生菌和益生元后,部分干眼症状及眼表指标有所改善。
不过,不同研究中的症状、客观体征和炎症指标并不总是同步变化,说明干预结果还受到菌株组合、剂量、疗程和干眼类型的影响。
运动和户外
在儿童近视的生活方式干预中,户外活动是证据相对明确的一项。它既减少持续近距离用眼,也让眼睛接触更强、更丰富的自然光照。
编辑
每天户外超过2小时,与较低的近视风险相关
悉尼近视研究发现,每天进行超过2小时户外活动的儿童,近视风险明显较低。中国学校开展的随机临床试验也显示,在学校课程中增加户外活动时间,可以减少儿童新发近视。
Sherwin等对既往研究进行系统综述和荟萃分析后估算,儿童和青少年每周户外时间每增加1小时,发生近视的可能性约下降2%。
户外活动预防发生,不一定控制已形成的近视
Xiong等的研究显示,增加户外时间可以降低儿童新发近视率,但对于已经近视的儿童,并未观察到明确的近视进展减缓效果。
这提示户外活动的优势可能主要体现在近视发生之前,尤其适合父母近视、远视储备不足或尚未近视的儿童。
为什么户外光照可能抑制眼球过度生长?
首先,户外光照强度通常远高于室内环境。明亮光线可能激活视网膜中的多巴胺能无长突细胞,增加视网膜多巴胺信号。多巴胺被认为是调节眼球生长的重要信号之一,可能抑制眼轴过度延长。
其次,户外环境拥有更远的视距和更丰富的空间层次,可以减少长时间固定近距离调节。自然光的光谱组成也与室内照明不同,可能影响视网膜对眼球生长信号的处理。
室内变亮,不完全等同于户外活动
动物实验中,提高环境光照强度甚至可以明显抑制实验性近视。
但户外活动是否主要通过紫外线和维生素D发挥作用,研究结果并不一致。
单纯改善室内照明、增加工作间歇、眺望远处或调整桌椅高度,尚未显示出与户外活动相同的近视预防效果。
这并不是说用眼休息没有价值,而是说,短暂远眺或开亮室内灯,目前不能被视为户外活动的等效替代方案。
羽毛球和乒乓球:可能改善视觉调节
Liu等对儿童和青少年运动干预进行网络荟萃分析后认为,在不同运动方式中,羽毛球和乒乓球对视觉健康的综合效果较为突出。
编辑
这类运动需要持续追踪快速移动的球,并在不同距离之间频繁切换视线,可能促进睫状肌交替收缩和放松,缓解长时间注视固定近距离目标造成的视疲劳。
然而,也有部分研究甚至没有发现室内运动时间与近视之间存在关联。因此,与其强调某一种特殊运动,更有依据的做法是:
优先保证儿童每天有充足的户外时间,再在户外活动中选择跑步、球类、骑行或游戏等孩子能够长期坚持的运动。
生活方式
近距离用眼:持续时间和阅读距离可能比看屏幕更重要
阅读、写作和电子设备使用都属于近距离用眼。长时间注视近距离目标时,眼睛需要持续调节;如果调节反应不足,视网膜可能出现一定的远视性离焦,被认为可能向眼球传递促进眼轴增长的信号。
近距离学习是儿童近视研究中最常见的环境因素之一。需要关注:距离是否过近、是否长时间不间断、是否伴随大量学习任务,以及屏幕使用是否挤占了户外和睡眠时间。
编辑
休息、远眺和改善照明:有助于缓解疲劳
增加学习工作间歇、远眺和改善室内照明,经常被用于缓解近距离用眼后的眼疲劳。桌椅高度和阅读姿势也会影响舒适度及观看距离。
睡眠:部分研究认为睡得少风险更高
睡眠可能通过昼夜节律、激素分泌、户外时间和近距离用眼行为影响眼球发育,也可能让持续紧张的睫状肌得到放松。
Wei等对12~19岁韩国青少年的研究显示,睡眠时间越短,近视越常见。Xu等发现,每天睡眠9小时的儿童,近视风险低于每天睡眠不超过7小时者;Ayaki等也观察到,高度近视儿童的睡眠时间最短。
但另一些研究没有得到相同结果。因此,睡眠可能是近视风险中的一部分,但目前不能说多睡一定就能减缓眼轴。保证充足、规律的睡眠,更重要的意义可能是减少夜间近距离用眼,并维持正常的昼夜节律和身心状态。
学业压力和心理应激:可能放大近距离用眼的影响
学业压力往往与长时间近距离学习、屏幕暴露、睡眠不足、户外活动减少同时出现,很难把它们完全分开。因此,也应关注作业负担、焦虑、睡眠和休息时间等。
编辑
二手烟:婴幼儿期暴露可能与早发近视有关
近视相关生活方式管理不仅涉及孩子本人,也涉及家庭环境。
Chua等研究了197名从出生至6个月期间接触二手烟的儿童。与没有暴露的儿童相比,早期接触烟草烟雾者后来出现近视的情况更多;如果家人在家中、汽车内或儿童身边吸烟,关联更加明显。
避免孕期和婴幼儿期烟草暴露,具有明确的全身健康价值,也可能降低早发近视风险。
以上这些措施更适合用于降低近视发生风险和改善整体健康。对于已经发生并持续进展的近视,生活方式管理仍然重要,但需要与规范验光、眼轴监测及有效的光学等干预结合。
光学和药物控制
目前儿童近视控制还包括DIMS框架镜、多焦点隐形眼镜、角膜塑形镜和阿托品滴眼液等措施。这些比较常见的光学干预手段本文不再展开介绍。
儿童近视并不是一个孤立发生在眼睛里的问题。眼轴增长背后,还交织着生长发育、饮食营养、免疫代谢、睡眠、压力、生活方式等多方面因素。“肠-眼轴”的提出,正是让我们开始从更完整的身体环境中理解近视。
围绕肠道和营养的干预,也不是补得越多越好。不同儿童的饮食结构、菌群基础和代谢能力存在差异,同一种膳食纤维、益生菌或营养补充剂,产生的反应也可能不同。因此,在调整饮食和营养时,除了了解孩子平时吃什么,也可以结合菌群组成和相关功能评估,找到更值得优先改善的环节。
未来,随着眼科检查、微生态检测、代谢组学和儿童健康数据逐步融合,近视防控有望从相对统一的健康建议,走向更早的更精细的风险识别和个体化管理。一套将眼轴、屈光度、饮食、菌群和生活方式共同纳入的儿童眼健康管理体系值得期待。
儿童青少年近视防控,正在从单纯关注眼睛,走向对生长发育和整体健康的系统管理。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Omar WEW, Singh G, McBain AJ, Cruickshank F, Radhakrishnan H. Gut Microbiota Profiles in Myopes and Nonmyopes. Invest Ophthalmol Vis Sci. 2024 May 1;65(5):2.
Tien PT, Wei CC, Lin SC, Meng PP, Huang YT, Chen JJ, Wu MY, Shih YH, Hsu TJ, Tsai FJ, Wang YC, Lin HJ, Wan L. Early-life exposure to antibiotics increases the risk of myopia: A retrospective cohort study. Biomedicine (Taipei). 2026 Jun 1;16(2):75-86.
Luan Z, Zheng Y, Zhang N, Chen Y, Wei S, Ren G, Kong F, Ju D, Hao R. Sex-specific associations between gut microbiota and myopia in adolescents: a clinical predictive modeling study. Front Cell Infect Microbiol. 2026 May 28;16:1778840.
Li Y, Tan Z, Duan J. The stress-myopia pathway: A pivotal hub in myopia pathogenesis. Neurosci Biobehav Rev. 2026 Jul;186:106668.
Zhang Z, Liao D, Zhao L, Lu X. Gut-ocular surface axis in dry eye disease: phenotype-specific mechanisms, evidence, and microbiome-targeted interventions. Front Cell Infect Microbiol. 2026 Jul 6;16:1873050.
谷禾健康
早晨刷牙时,你会不会偶尔看见泡沫里带着一点血丝?和人近距离说话前,会不会担心自己有口臭?体检报告里的葡萄糖、胆固醇总能引起重视,可牙龈反复出血、晨起口苦、口气不清新,却常常被一句“最近上火了”轻轻带过。
长期以来,我们对口腔健康的判断方式相当”粗放”:牙不疼就是没病,牙龈偶尔出血是”上火”,口臭是”肠胃不好”。等到牙疼得睡不着、牙齿松动才去看医生,往往已经到了牙周炎晚期、牙槽骨吸收不可逆的阶段。
问题在于,在症状出现前,口腔微生态可能已发生显著变化。口腔并非无菌空间,而是人体仅次于肠道的第二大微生物群落。健康成年人口腔中大约有700余种细菌,以及真菌、病毒和古菌等,总量可达数百亿。它们分布于唾液、舌苔、牙菌斑、龈沟和黏膜等不同生态位,通过竞争、共生与拮抗形成复杂的微生态系统:部分维持口腔稳定,部分则与龋齿、牙周炎和口臭等相关。
菌群失衡往往早于症状出现——龋齿在真正形成龋洞前,可能已经历了持续的酸性侵蚀;牙周炎从刷牙出血到牙齿松动,中间可能有很长一段没有明显痛感的时间;口臭也并不总是“吃了重口味食物”那么简单。它们背后常常藏着同一个被忽略的变化:口腔里的微生物群落,正在失去原本的平衡。
更值得重视的是,口腔并不是与身体其他部位隔绝的空间。它既是食物进入消化道的第一站,也是呼吸道的门户。口腔局部长期存在的细菌和炎症,可能经由吞咽、微量吸入或短暂入血等途径,与代谢、心血管和免疫相关问题发生联系。它提醒我们:管理口腔,不能只在牙疼时才开始,也不能只把目光放在一颗牙上。
口腔菌群检测尝试把肉眼看不见的微生态变化转化为可阅读的信息:哪些菌偏多?哪些有益菌不足?可能关联哪些口腔风险?又有哪些日常因素值得优先调整?对反复龋齿、牙龈出血、顽固口臭、牙周问题反复的人来说,它有助于从“反复处理症状”走向“寻找失衡原因”;对希望提前管理健康的人来说,它也提供了一张可供追踪的口腔微生态基线。
接下来,本文将从口腔菌群讲起,解释口腔菌群检测究竟能看见什么、检测有哪些意义与价值、哪些人更值得检测,以及怎样把检测结果转化为贴近日常生活、能够长期坚持的科学干预方案。
很多人想到口腔健康,首先想到的是“有没有蛀牙”?“牙齿白不白”?“口气重不重”?但从现代口腔医学和微生态学的角度看,口腔并不是一个只有牙齿和牙龈的空间,而是一个高度复杂、不断变化的“小型生态系统”。
作为人体与外界接触最频繁的入口之一,口腔拥有仅次于肠道的丰富微生物群落。我们每天吃饭、喝水、说话、睡眠、刷牙和吞咽,都会持续影响这一生态环境。
研究显示,成年人口腔内约有500亿至1000亿个细菌,目前已发现的口腔微生物超过700种,常见优势菌约200种;此外还包括真菌、病毒和古菌等。它们从出生后逐步定植,长期分布于牙面、牙缝、牙龈沟、舌背、口腔黏膜和唾液中。
成人口腔内不同生态位及其优势细菌类群
DOI: 10.1007/978-3-031-79146-8_2
健康口腔并非无菌最好,而是生态平衡
很多人从小接受的口腔卫生观念是“把细菌刷掉”,认为口腔中的细菌越少越好。事实上,这并不准确。健康口腔本来就需要一群相对稳定的常驻微生物。在谷禾检测报告中,这些细菌通常分为两大阵营:
☛第一阵营:口腔共生菌/潜在有益菌: 它们是口腔的”维和部队”。比如血链球菌(Streptococcus sanguinis)能产生过氧化氢,抑制致龋的变异链球菌;罗伊氏乳杆菌(Lactobacillus reuteri)能分泌罗伊氏菌素,抑制牙龈卟啉单胞菌;黏液罗斯氏菌(Rothia mucilaginosa)定植在舌背和软腭,很少致病;奈瑟菌属能把膳食中的硝酸盐还原为亚硝酸盐,后者在体内转化为一氧化氮(NO),帮助血管舒张、调节血压。这些菌越多、越占优势,口腔越健康。
☛第二阵营:口腔病原菌: 它们是”捣乱分子”,一旦失控就会引发疾病。致龋菌如变异链球菌(Streptococcus mutans)能把糖发酵成乳酸,把牙菌斑 pH 降到 5.5 以下,溶解牙釉质;牙周致病菌如牙龈卟啉单胞菌,能分泌叫 gingipains 的蛋白酶,降解补体、劫持免疫信号,让菌群逃脱宿主防御,并驱动牙槽骨吸收;产硫菌如Solobacterium moorei,分解含硫氨基酸产生硫化氢,是口臭的元凶。
健康口腔中,有益菌与致病菌保持动态平衡:前者占优势,后者维持在较低水平。一旦平衡被打破——比如高糖饮食、口腔清洁不到位、吸烟、压力、抗生素滥用——致病菌就会趁虚而入,有益菌萎缩,多样性下降,菌群进入“失调”状态。失调不是某一种菌多了那么简单,而是整个生态结构发生了质变。
龋齿、口臭和牙周炎,本质上都和菌群失调有关
生活中常见的蛀牙、牙龈出血、口臭和牙齿松动等,并不只是“没刷干净牙”这么简单。这些问题往往提示口腔微生态平衡已受到影响,与菌群失衡及其引发的局部炎症密切相关。
(1)龋齿(蛀牙): 当你频繁摄入糖分,变异链球菌等产酸菌获得充足”燃料”,持续产酸,牙菌斑 pH 长期低于 5.5,牙釉质脱矿速度超过再矿化,龋洞就形成了。
值得注意的是,致龋过程里”产酸”和”耐酸”是两回事——变异链球菌既产酸又耐酸,而韦荣氏菌虽不直接产酸,却消耗乳酸、维持低 pH 环境,为更耐酸的致病菌铺路。这就是为什么报告里韦荣氏菌偏高也会被标记为龋齿风险信号。
(2)牙周炎: 这是成年人失牙的首要原因。当龈下菌斑菌群失衡,牙龈卟啉单胞菌、福赛坦纳菌、齿垢密螺旋体(合称”红色复合体”)大量增殖,它们形成高度组织化的生物膜,持续激活 IL-1β、TNF-α、IL-6 等促炎因子,通过 RANKL/RANK 通路驱动破骨细胞活化,导致不可逆的牙槽骨吸收。牙龈出血、牙周袋加深、牙齿松动,都是这场”骨吸收战争”的不同阶段。
编辑
(3)口臭: 约 80–90%的口臭源自口腔本身。舌背和牙周袋里的厌氧菌分解含硫氨基酸(半胱氨酸、甲硫氨酸),产生硫化氢、甲硫醇、二甲基硫等挥发性硫化物(VSC),就是那股臭鸡蛋味。
编辑
Solobacterium moorei、Atopobium parvulum、产黑色素普雷沃氏菌是主要”产臭工厂”。所以持续性口臭不一定是”肠胃不好”,而可能是舌背和牙周袋菌群失调的信号。
(4)黏膜与根管感染:粪肠球菌(Enterococcus faecalis)以极强耐药性著称,是根管治疗失败、持续性根尖周炎的主要元凶;衣氏放线菌可引起面颈部慢性化脓和瘘管。这些菌的存在,提示口腔某些”死角”已经形成慢性感染灶。
口腔不是孤岛:口腔菌群影响全身?
如果说上面四类还停留在“口腔内部”,那么近二十年最令人震惊的发现是:口腔菌群失衡,会通过多条通路波及全身。
连接口腔菌群失调与全身疾病的主要机制通路
编辑
doi: 10.1080/20002297.2026.2635233.
• 口腔-血液通路:牙龈沟和牙周组织血管丰富。咀嚼、刷牙、使用牙线等日常活动可造成微小损伤,使口腔细菌短暂进入血液;在牙周炎时,牙周袋上皮溃疡形成持续“入口”,更多细菌及其毒力因子可进入循环。
注:在动脉粥样硬化斑块中,已检测到牙龈卟啉单胞菌、变异链球菌、具核梭杆菌等 23 种口腔细菌的 DNA 甚至活菌。它们直接定植血管壁,激活内皮炎症,促进泡沫细胞形成。
编辑
• 系统性炎症通路:口腔菌群失调可诱发持续牙周炎症。局部产生的TNF-α、IL-1β、IL-6等促炎因子可进入血液,并刺激肝脏产生C反应蛋白等炎症指标,推动全身低度慢性炎症,进而影响血管内皮、糖代谢和免疫稳态。
• 免疫失调与分子模拟通路:某些牙周相关菌可改变宿主蛋白,产生免疫系统可能误识别的“新抗原”。例如,蛋白瓜氨酸化可能诱导抗瓜氨酸化蛋白抗体形成,在遗传易感者中与自身免疫反应有关。口腔炎症还可能对免疫细胞进行持续“预激”,使其在其他组织中产生过强的炎症反应。
• 微生物代谢物通路:口腔菌代谢产生的小分子及其前体可被吸收进入血液,影响远端器官的代谢和血管功能。例如,口腔菌可将膳食硝酸盐还原为亚硝酸盐,后者进入血液后参与一氧化氮生成,有助于血管舒张;但在菌群失调背景下,某些代谢产物也可能参与代谢紊乱和炎症过程。
关键口腔病因及其系统性影响
编辑
doi: 10.1080/20002297.2026.2635233.
• 口腔-胃肠道通路:口腔是幽门螺杆菌的重要储存库,牙菌斑中可检出存活的 Hp,随吞咽下行定植胃黏膜。口腔的梭杆菌、普氏菌、韦荣氏菌也可进入胃部,在 Hp 感染导致胃酸减少的条件下定植,产生亚硝胺,加速萎缩性胃炎→肠上皮化生→胃癌的级联反应。
• 口腔-呼吸道通路:健康人每天微量误吸约 0.01–0.1 毫升口腔分泌物,正常情况下被肺部清除。但当口腔菌群失调、吞咽功能下降(老年人、脑卒中后),口腔里的肺炎链球菌、金黄色葡萄球菌、铜绿假单胞菌及厌氧菌就会定植下呼吸道,引发吸入性肺炎。研究显示,口腔卫生干预可使 ICU 机械通气患者呼吸机相关性肺炎发生率降低约 40%。
• 口腔-脑通路:牙龈卟啉单胞菌可经三叉神经轴突顺行传输或突破血脑屏障进入脑组织,在阿尔茨海默病患者脑中检出其 DNA 及毒力蛋白酶 gingipains;变异链球菌的特定亚型(含胶原结合蛋白)可定植脑血管,诱发微出血,与脑出血独立相关。
所以,关注口腔菌群,是为了更早发现失衡的方向,更有针对性地保护牙齿、牙龈和全身健康。
传统口腔检查的”盲区”
大多数人理解的”口腔检查”,可能是每年洗牙时医生拿探针敲一敲、看一看:有没有龋洞、牙龈红不红、牙结石多不多。这套方法沿用百年,确实有效,但它有一个根本局限——它只能看到”结果”,看不到”原因”。
传统检查对 “无症状期” 几乎无能为力
龋洞是菌斑产酸脱矿之后的产物,牙周袋是骨吸收之后的产物,口臭是产硫菌已经大量增殖之后的产物。当这些”结果”被肉眼或 X 光捕捉到时,菌群层面的失衡往往已经持续了数月甚至数年。传统检查回答的是”现在坏到什么程度“,而菌群检测回答的是”为什么会坏、正在往哪个方向坏“。
更深一层,传统检查对“无症状期”几乎无能为力。但一个牙齿不松、刷牙偶尔出血的人,大概率不会主动去做全面的口腔检查。口腔菌群检测的意义,正是把这个”沉默的窗口期”彰显出来。
到底在测什么:从”培养”到”测序”的跨越
早期的口腔微生物研究靠”培养法”——把样本涂在培养皿上,看长出什么菌。但口腔里超过 50% 的细菌是“不可培养”的,培养法只能看到冰山一角。
今天的菌群检测,普遍采用高通量测序技术,针对细菌核糖体小亚基 RNA 基因的可变区(如 V3–V4 区)进行扩增测序,能鉴定到“属”或”种”级别,回答“有哪些菌、各占多少”。
口腔菌群检测能回答的四个核心问题
一份合格的口腔菌群检测报告,至少能回答四个问题,这四个问题恰好对应了健康管理的四个环节:
①—我现在的口腔菌群处于什么状态?
报告会给出一个整体结论——是”稳态良好””稳态一般”还是”紊乱”。这个总判断,比单看某一项指标更重要,因为它反映的是生态结构。
②—哪些菌超标了、哪些菌偏少了?
报告会逐一列出超标致病菌及其倍数,以及偏少的有益菌。这是”敌情通报”——知道敌人是谁、在哪、有多强,才能精准打击。
③—这些失衡意味着什么疾病风险?
报告会基于菌群-疾病的循证关联,给出多个维度的风险评分,并标注证据等级(A/B/C)。这一步是把”菌”翻译成”病”——让非专业人士也能看懂”这堆细菌名字”背后的健康含义。每一个分数背后,都对应着具体的菌群-疾病机制和文献证据。
④—我该怎么办?
报告会给出针对性的干预建议,从口腔护理、饮食调理到全身健康管理。这是检测的落脚点——检测不是目的,干预才是。
证据等级:理性看待风险评分
这是最容易被忽视、却最该被重视的一点。报告里每一项风险评分都标注了证据等级,依据的是牛津循证医学中心(OCEBM 2011)分级标准:
• A 级:有系统评价或多项随机对照试验(RCT)支持,证据最充分。比如牙周炎与龋齿的菌群关联,大量 RCT 和 Meta 分析已证实,属于 A 级。
• B 级:有队列研究或病例对照研究支持,证据较强但尚需更多验证。比如牙周炎与动脉粥样硬化的关联,多数为 B 级。
• C 级:仅有机制研究、动物实验或小样本观察,处于探索阶段。比如某些菌群-神经认知的关联,目前多为 C 级。
编辑
理解这个分级,才能避免两种极端:一是把所有高分都当”判决书”,陷入焦虑——比如评分 99 分,看起来吓人,但如果证据等级是 C 级,它更多是一个”值得关注的探索性信号“,而非”你一定会得抑郁症”;二是把所有低分都当”没事”,忽视早期预警。正确的态度是:A 级高分优先处理,B 级高分值得关注,C 级高分作为生活方式调整的参考。
检测的定位:风险评估,而非疾病诊断
必须反复强调:口腔菌群检测是”风险评估与健康管理”工具,不是”疾病诊断”工具。它不能替代牙科临床检查(探针、X 光)、不能替代医学检验(血糖、血脂、幽门螺杆菌呼气试验)、更不能替代病理诊断。它的价值在于”前置”和”补充”——在症状出现之前提示风险方向,在临床检查之外补充菌群维度的信息。
打个比方:菌群检测像体检里的”血脂化验”,它告诉你风险偏高,但到底有没有冠心病,还得靠心电图、冠脉造影等临床检查。同样,菌群检测告诉你牙周炎风险 80 分,但到底有没有牙周袋、骨吸收多少,还得靠牙科的探诊和全口 X 光。两者结合,才是完整的健康判断。
从统一建议到“因菌施策”
传统的口腔健康建议,几乎是”千人一面”的:早晚刷牙、用含氟牙膏、少吃糖、定期洗牙等。这些建议没错,但太笼统。
✔传统建议太过笼统,根据检测报告更有针对性
同样是”口臭”,有人是舌背产硫菌过多,有人是牙周袋厌氧菌失控,有人是扁桃体结石——原因不同,干预方向完全不同。
对舌背产硫菌,重点在清洁舌苔、使用舌刮;对牙周袋厌氧菌,重点在龈下刮治、局部抗菌;对扁桃体结石,则要耳鼻喉科处理。不分原因地猛刷牙、猛漱口,可能南辕北辙。
菌群检测的价值,在于把”千人一面”变成”因菌施策”。帮助口腔医生和受检者理解:风险更可能来自哪里,下一步应该优先做什么。
帮助发现“没有疼痛,但已经存在问题”
许多口腔疾病的发展是”沉默”的。牙周炎从牙龈炎到骨吸收,可能持续数年而无明显疼痛;龋齿从脱矿到成洞,早期也无感觉;口腔-全身的慢性炎症通路,更是悄无声息。等到症状明显,往往已经错过最佳干预时机。
发现”沉默的失衡”,抢占干预窗口
菌群检测最大的价值之一,是把这个“沉默窗口期”显影。例如一份报告显示牙周炎风险 80 分(高)、18 种病原菌超标、有益菌大面积偏少。如果没有这次检测,他大概率会继续”牙不疼就不看医生”,直到某天牙齿松动或牙龈反复流脓,才发现牙槽骨已经吸收。
而此时,骨吸收是不可逆的——再好的治疗也只能”止损”,无法”复原”。检测让他提前数年看到风险,从而有机会在不可逆损伤发生之前介入。
连接口腔与全身:从”看牙”到”管全身”
传统观念里,”看牙”和”看内科”是两回事。但菌群检测把两者连了起来。除了牙周炎、龋齿、口臭这些口腔问题,还有糖尿病、肥胖、高血压、动脉粥样硬化、阿兹海默病、慢阻肺、类风湿性关节炎、甚至肿瘤相关疾病——这些疾病风险并非凭空而来,而是基于口腔菌群与这些疾病已被验证的关联机制。
编辑
doi: 10.1080/20002297.2026.2635233.
①糖尿病:目前较有共识的双向关系
糖尿病会增加牙周炎风险,而重度牙周炎也可能增加血糖控制难度。
已有研究提示,规范牙周治疗后,部分糖尿病患者在数月后糖化血红蛋白可出现一定幅度下降。这个效果不能取代降糖药、饮食控制和运动,但说明牙周治疗应被看作糖尿病综合管理的一部分。
2型糖尿病与牙周炎之间的关系
编辑
doi: 10.1080/20002297.2026.2635233.
②心血管健康:有关联,但不能以菌群报告诊断
口腔菌群与动脉粥样硬化、冠心病、脑卒中等存在较多流行病学关联。口腔病原菌DNA或相关成分在部分动脉斑块中被检出,也提示可能存在炎症和微生物相关机制。
注:菌群检测只能提供附加线索,不能替代心电图、血脂、血压监测、冠脉评估等标准检查。
心血管疾病(CVDs)中口腔-肠道轴的机制
编辑
doi: 10.3389/fcimb.2025.1658502
③肥胖、代谢健康等:关系复杂
肥胖、胰岛素抵抗、脂肪肝与口腔菌群变化、牙周炎之间存在双向影响的可能。高糖高脂饮食、慢性低度炎症、睡眠不足和口腔卫生差,可能同时推动代谢问题和口腔失衡。
慢性牙周炎与肥胖之间的双向联系机制
编辑
doi: 10.1016/j.jds.2025.07.009
④胃肠道疾病:关联密切
口腔菌群与胃炎、反流性食管炎、溃疡性结肠炎、克罗恩病存在双向关联。口源微生物可能影响肠道菌群、肠屏障和免疫平衡。
牙周炎与炎症性肠病之间的微生物相关性
编辑
doi: 10.3389/fcimb.2023.1132420
⑤呼吸道健康:对老年、吞咽障碍尤其重要
口腔是上呼吸道和下呼吸道微生物的重要来源之一。对吞咽功能差、长期卧床、气管插管、免疫低下者,口腔病原菌可能通过微误吸进入下呼吸道。
⑥自体免疫疾病
牙周相关菌可通过异常瓜氨酸化、抗瓜氨酸化蛋白抗体形成及免疫失衡,参与自身免疫反应。与系统性红斑狼疮、类风湿性关节炎等存在一定关联。
类风湿性关节炎发病机制中的口腔-肠道-免疫-营养轴
编辑
doi: 10.3390/ijms27052385
⑦神经系统疾病
与阿尔茨海默病、帕金森病和认知下降相关,可能通过全身炎症、血脑屏障受损及神经免疫激活影响大脑。
口脑轴及在阿尔茨海默病中的作用
编辑
doi: 10.1080/20002297.2026.2635233.
抑郁、焦虑、自闭症谱系障碍和精神分裂症可观察到口腔菌群差异,但目前多为相关性证据,易受饮食、用药、吸烟和口腔卫生等因素影响。
口腔微生物群影响神经精神疾病的可能机制
编辑
doi.org/10.1016/j.bbr.2024.115111
⑧多种肿瘤
口腔菌群与口腔癌、食管癌、胃癌、结直肠癌、肺癌、胰腺癌等存在关联,可能涉及慢性炎症、免疫逃逸、致癌代谢物及病原体迁移。
具核梭杆菌促进结直肠癌进展的机制
编辑
doi: 10.1080/20002297.2026.2635233.
正因如此,受检者虽然只是做了一次口腔菌群检测,报告却同时给出了口腔消化疾病、心血管疾病、神经系统疾病、代谢疾病、呼呼吸系统疾病、⾃体免疫疾病、肿瘤相关疾病等多个维度的风险评估。这并非”夸大其词”,而是基于口腔菌群与全身疾病已被反复验证的关联机制。
为干预效果提供”可量化”的追踪
健康管理的难点之一,是“不知道干预有没有用”。你开始认真刷牙、用牙线、调整饮食,三个月后口臭轻了些——但这是菌群真的改善了,还是只是暂时的?你做了龈下刮治,牙龈不出血了——但致病菌是不是真的减少了?没有检测,这些问题只能靠感觉回答。
用数据变化说明问题
菌群检测提供了“可量化”的追踪手段。干预前测一次,建立基线;干预 3–6 个月后复测,对比超标病原菌的倍数变化、有益菌的恢复情况、风险评分的升降。
这些数字是未来评估“干预是否有效”的标尺。如果复测时这些数字明显下降,说明干预方向正确;如果不降反升,则需要调整策略。这种”用数据说话”的闭环,是传统”凭感觉”无法实现的。
提升健康意识与依从性
最后一个常被低估的价值:检测本身能显著提升一个人的健康意识和行为依从性。心理学里有个”健康信念模型”——人们是否采取健康行为,很大程度上取决于他们是否”感知到风险”并”相信行动有效”。
很多人在看到自己的菌群报告后,会第一次认真学怎么用牙线、第一次主动减少含糖饮料、第一次预约牙周专科。这种“被数据触动”的行为改变,是检测最朴素也最实在的价值。
口腔菌群检测并非”人人都必须做”,对于没有口腔症状、口腔检查正常、定期洁牙、生活方式稳定的人,常规口腔检查和预防护理已非常重要,菌群检测可以作为可选项目。以下几类人群,做检测通常更有现实意义。
口腔疾病反复发作或久治不愈者
如果你属于以下情况,检测有助于帮你找到“治标不治本”的根源:
编辑
• 反复龋齿:补了又蛀、蛀了又补,尤其根面龋、邻面龋频发。检测可明确是否存在变异链球菌、龋齿放线菌等致龋菌的持续高负荷,以及是否有韦荣氏球菌等”耐酸帮凶”。
• 牙周炎反复发作:洁治后不久又出血、牙周袋反复加深。检测可评估龈下致病菌(牙龈卟啉单胞菌、齿垢密螺旋体、福赛坦纳菌等)是否未被清除,是否存在耐药生物膜。
• 顽固性口臭:各种漱口水、口香糖都试过,口臭依旧。检测可定位是舌背产硫菌(莫氏细小杆菌、极小陌生菌)还是牙周袋厌氧菌(产黑色素普雷沃氏菌)主导,从而精准干预。
• 根管治疗反复失败:检测可排查粪肠球菌等顽固耐药菌的定植。
患有全身慢病、希望协同管理者
口腔菌群与全身慢病的关联已被反复验证,以下人群尤其值得检测:
编辑
• 心血管疾病患者或高危人群:牙周致病菌入血定植血管壁、驱动内皮炎症是动脉粥样硬化的促发因素之一。提示口腔菌群可能是心血管风险的一个”隐形推手”。
• 糖尿病患者:牙周炎与糖尿病是“双向恶化”关系——糖尿病增加牙周感染风险,牙周炎加重胰岛素抵抗。研究显示,有效治疗牙周炎可使糖尿病患者的糖化血红蛋白(HbA1c)下降约 0.4%。
• 代谢综合征/肥胖人群:口腔菌群参与能量摄取和炎症调节,产黑色素普雷沃氏菌等与肥胖相关。
• 幽门螺杆菌感染者、胃癌高危人群:口腔是幽门螺杆菌(Hp)的储存库,口腔菌群失调还可能促进亚硝胺生成。
• 阿尔茨海默病高危/认知下降人群:牙龈卟啉单胞菌及其毒力因子已在AD 患者脑组织中被检出。
但必须明确:牙周治疗不能替代全身慢病治疗,口腔菌群检测也不能用于诊断全身慢病。
备孕、孕期及围绝经期女性
青春期、妊娠期和更年期的激素波动,都可能影响牙龈血流、局部免疫和菌群生态。牙周炎是早产低体重儿的独立危险因素(风险约升高 2–3 倍),备孕期做一次菌群检测、提前处理牙周风险,比孕期发现再处理要安全得多——孕期尤其是孕早期,许多牙科治疗受限。
编辑
备孕前建议完成:
孕期出现牙龈出血和肿胀很常见,但不应忽略。涉及药物、强效漱口水或益生菌补充时,应由口腔医生与产科医生共同评估。
种植、正畸、复杂修复前后的人群
种植体、冠桥、贴面、活动义齿、隐形矫治器和固定托槽都可能带来新的清洁死角。
对于牙周炎史、龋病高风险、吸烟者、糖尿病患者或口腔清洁困难者,菌群检测可辅助制定更严格的维护方案,但仍需以临床检查和定期维护为主。
儿童和青少年
儿童口腔菌群处于动态建立阶段,受母婴传播、家庭环境、饮食、牙齿萌出、抗生素暴露、口腔卫生习惯等影响。
编辑
适合关注的情况包括:
儿童检测结果必须结合年龄、乳牙或恒牙状态、饮食和家庭护理情况理解,不能照搬成人参考范围,更不能因为“菌群异常”而随意使用抗生素或强消毒产品。
老年人及吞咽功能下降者
老年人常见口干、根面龋、牙周病、义齿清洁不良、吞咽能力下降和多重用药。对卧床、脑卒中后、认知障碍、帕金森病或吞咽障碍人群,口腔卫生还与误吸性肺炎风险相关。
检测可评估口腔是否存在肺炎链球菌、金黄色葡萄球菌、铜绿假单胞菌及厌氧菌的高负荷,并通过强化口腔护理降低误吸风险。
这类人群重点不是追求复杂菌群“优化”,而是:
长期不良生活习惯者
除此之外,以下人群也值得检测:
编辑
拿到报告后,“怎么办”才是关键。本章把干预手段按“基础且证据更扎实”到“辅助或新兴方法”排列,逐一讲解如何”结合菌群”来干预。对绝大多数人来说,最有效的不是昂贵的产品,而是规范清洁、专业治疗和长期生活方式改变。
口腔卫生:把”机械清洁”做到位
✔巴氏刷牙法:每天两次,每次不少于 2 分钟。 关键不是”刷得用力”,而是“刷得到位”——刷毛与牙面成 45°,指向牙龈方向,小幅度(2–3 颗牙)水平颤动,然后向冠方拂刷。这个角度能让刷毛进入龈沟 1 毫米左右,清除那里的菌斑。
✔牙线或牙间隙刷:牙刷只能清洁牙面的 60%,剩下的 40% 在牙缝里,只能靠牙线或间隙刷。邻面是龋齿和牙周炎的高发区。
✔舌苔清洁:这是最被忽视的一步,用舌刮或牙刷轻刷舌背,从舌根向舌尖方向刮 3–5 次,能显著减少产硫菌负荷和挥发性硫化物。研究表明,舌刮可使口臭相关 VSC 降低约 50–70%。
✔冲牙器是辅助:冲牙器对清除食物残渣、冲洗矫治器周围和改善部分牙龈炎有帮助,但对紧密邻接面成熟菌斑的机械刮除能力通常不如牙线或牙间隙刷。
✔含氟牙膏:氟化物通过促进牙釉质再矿化、抑制致龋菌代谢,是预防龋齿最有效、证据最充分的手段(A 级证据)。
注:成人建议含氟浓度 1000–1500 ppm。
专业治疗:先除病灶,再谈生态恢复
菌群检测提示风险,但真正的”清除”往往需要专业手段。
✔定期洁治(洗牙):牙结石是钙化的菌斑,表面粗糙、持续吸附细菌,靠刷牙无法清除。超声波洁治能去除龈上牙石和色素,是控制菌斑的基础。
✔龈下刮治与根面平整:针对牙周袋,当深度超过 4 毫米,龈下菌斑和牙结石已无法用普通洁治清除,需要局麻下用刮治器深入牙周袋,平整根面、清除生物膜。这是牙周炎治疗的”金标准”,对降低龈下致病菌(牙龈卟啉单胞菌、齿垢密螺旋体等)负荷至关重要。
✔龋齿及时修复:一旦发现龋洞,尽早充填,防止病变深入牙髓。
✔根管感染的处理:粪肠球菌等耐药菌导致的根管持续感染,可能需要根管再治疗或显微根尖手术,配合根管内封药。
✔必要时的抗菌辅助:对于特定致病菌高负荷、机械治疗效果不佳的情况,牙医可能建议局部或全身抗菌药物(如米诺环素凝胶、甲硝唑等),但必须在专业指导下使用,避免滥用加剧菌群失调。
菌群调节:使用特定口腔益生菌
益生菌治疗的目标是用非致病微生物替代有害的本地微生物。益生菌常被用于治疗各种口腔和牙科疾病,如牙周病、口臭、龋齿和口腔念珠菌病等。
益生菌如唾液链球菌(Streptococcus salivarius M18、Streptococcus salivarius K12)、植物乳杆菌(Lactobacillus plantarum)、乳双歧杆菌(Bifidobacterium lactis)、罗伊氏乳杆菌(Lactobacillus reuteri)和唾液乳杆菌(Lactobacillus salivarius),已经证明了它们在支持口腔健康方面的功效。
• 唾液乳杆菌(Lactobacillus salivarius):可以产生强大的抗菌蛋白,称为细菌素,这可能对各种细菌的生长有害。此外,实验室研究表明,唾液乳杆菌直接与牙龈上皮细胞结合,表现出抗炎特性并促进和谐的免疫反应。L. salivarius (WB21 和 TI 2711)可能通过包括对变异链球菌的凝聚和生长抑制等机制减少龋齿,同时降低牙菌斑的产酸性。
• 罗伊氏乳杆菌(Lactobacillus reuteri):分泌罗伊氏菌素,抑制牙龈卟啉单胞菌、具核梭杆菌等牙周致病菌,多项 RCT 显示可减轻牙龈炎出血指数。L. reuteri (DSM 17938 和 ATCC PTA 5289)已被证明能显著减少口臭。
• 乳双歧杆菌(Bifidobacterium lactis):B.lactis HN019在临床牙周指标方面显著改善,牙周病原体减少更有效率,牙龈软骨液中的促炎细胞因子水平下降。
•植物乳杆菌(Lactobacillus plantarum):L.plantarum在抑制变异链球菌和白色念珠菌的生长、破坏致病性生物膜的形成,以及影响关键代谢通路、真菌耐受性和氧化应激相关基因表达方面表现出显著效果。
• 副干酪乳杆菌(Lactobacillus paracasei):可抑制变异链球菌,辅助降低龋齿风险。
•唾液链球菌 K12 / M18(Streptococcus salivarius):定植舌背,产生细菌素,抑制产硫菌和致病菌,对口臭和反复咽炎有循证支持。
还有研究认为,L. reuteri RC-14, L. rhamnosus GR-1和L. reuteri ATCC PTA 5289可能通过与酵母共聚,阻碍白色念珠菌的发育,从而避免其他病原体进入口腔表面。
注意
个性化口腔护理方法
除了益生菌,全面的口腔护理方案还能支持牙齿和牙龈的自然愈合,与人体口腔化学反应相协调,促进口腔健康。
✔木糖醇相关产品有助于减少变异链球菌
木糖醇是帮助调节口腔酸性的重要成分,定期使用木糖醇薄荷和口香糖与变异链球菌(S. mutans)数量减少相关,可能降低牙菌斑的附着性。
这些产品包括木糖醇、天然薄荷香、硬脂酸镁和天然薄荷。
木糖醇一旦被变异链球菌吸收,会显著干扰该细菌的正常能量生成途径,从根本上改变其生长和生存机制。与其他糖类不同,木糖醇无法被变异链球菌加工为能量,这会扰乱细菌正常的新陈代谢过程。这种破坏导致细菌细胞内木糖醇转化为木糖醇-5-磷酸,形成液泡并损伤细胞膜。这些变化阻碍了细菌的生长和存活能力。
此外,变异链球菌试图将脱磷酸化的木糖醇-5-磷酸排出细胞,但木糖醇代谢无能量,实际上使细菌饥饿,阻碍其生长,最终导致其死亡。同时,木糖醇还能刺激唾液分泌,有助于中和酸性环境。
✔针对特定口腔病原体的抗菌药物
甲硝唑:一种外用药物,对口腔内的专性厌氧微生物有效,包括来自感染坏死性牙髓的微生物。在体外实验中,甲硝唑抑制了超过99%的蛀牙病变和感染牙根质中的细菌。
青霉素:已被证明对多种革兰氏阳性链球菌和葡萄球菌菌株,以及某些革兰氏阴性菌有效。
氯己定:氯己定破坏唾液中酸性糖蛋白基团,可减少斑块粘附。它还通过粘附细胞外多糖或与钙离子竞争菌斑中的粘附,防止细菌粘附牙齿表面。
✔氯二氧化物(ClO2)有助于改善口臭和除菌
氯二氧化物(ClO2)作为目标化合物,通过顺序机制作用于挥发性硫化合物(VSCs),这些硫化合物是口腔臭味的主要来源。
最初,ClO2与硫醇化合物如L-半氨酸反应,生成ClO2−和硫醇自由基(RS.),随后将硫醇化合物转化为二硫键,如半胱氨酸。硫醇化合物的还原过程通过生成二硫化物进行,从而解决异味硫醇。同时,ClO2通过渗透细菌细胞并破坏细胞质氨基酸和膜蛋白,导致微生物细胞死亡,展现出杀菌特性。
✔不同种类的抗菌肽
抗菌肽广泛存在于人体内,具有抗微生物活性,被认为是清除口腔病原体的潜在有效分子。
口腔中最常见的抗菌肽包括α-和β-防御素(以hNP表示)、组胺、statherin、肾上腺髓质素、天青杀素和cathelicidins(LL37)。
一项研究显示,LL37/hCAP18衍生的合成肽对血链球菌具有增强的杀菌活性。此外,在与人类 b-defensins 比较时,发现 LL37 对包括 S.mutans、S. sanguinis、S. salivarius和 S. mitis在内的一组口腔细菌具有更高的活性。
Statherin(富酪蛋白)存在于唾液和龈盂液中,能抑制口腔内厌氧菌的生长。
Azurocidin是一种存在于唾液中的蛋白质,通过强结合脂多糖对革兰氏阴性菌表现出强效的抗菌活性。
✔精油也可以有效针对口腔病原体
精油(EOs)具有抗菌、抗真菌和抗炎作用,可通过破坏细胞膜通透性、诱导细胞成分泄漏,以及促进活性氧生成来干扰蛋白质合成和细胞分裂,最终导致微生物死亡。
在多种口腔病原体中,变异链球菌(S. mutans)对精油最敏感,其次为S. sobrinus、唾液链球菌(S. salivarius)、血链球菌(S. sanguis)和嗜酸乳杆菌(L. acidophilus)。
有限研究显示,牛至油可抑制白色念珠菌生物膜附着和形成。精油漱口水也可能减少牙菌斑、牙龈炎和牙周炎,可作为氯己定的辅助或替代选择。甜橙、苦橙、柠檬、酸橙、葡萄柚、佛手柑、柚子和金桔等柑橘类精油用于漱口水时亦显示出潜在药用价值。
谷禾口腔菌群检测报告会结合个人检测结果,提供针对性的个性化干预建议。
编辑
口腔微生物移植
口腔疾病的替代治疗之一是口腔微生物群移植(OMT),这是一种通过改变微生物群失调以恢复微生物生态平衡的治疗方式。
OMT旨在将健康供体的口腔生物移植至龋病或牙周炎患者。其流程包括:从无龋供体(可为患者家属)采集牙菌斑,以生理盐水保存,再用尼龙拭子涂布于龋活跃患者牙面。
注:理想供体应具有稳定、健康的口腔微生态,无致龋菌,尤其无变异链球菌,且糖刺激后口腔pH下降较小。
✔OMT可调节免疫与竞争病原菌
物种间相互作用和免疫调节可能是OMT发挥作用的重要机制。研究提示,OMT可降低IL-1、IL-6、TNF-α和TGF-β水平,从而减轻相关的炎症。
OMT可能通过在口腔定植、竞争病原菌的黏附位点和营养物质、产生细菌素及过氧化氢,并调节局部和全身免疫反应发挥作用。但移植生物膜需能适应受体口腔环境,并长期维持有益效应。
OMT的安全性要求与口服益生菌相似:供体生物膜应无病原风险且遗传稳定。然而,其具体机制和最佳实施方式仍不明确,例如应直接移植健康供体生物膜,还是预处理以减少潜在致病菌;体外培养生物膜与天然共生生物膜何者更优,也尚待研究。现有证据表明,具有促健康特性的临床菌株生物膜可能有助于干扰或替代疾病相关生物膜。
饮食调理:喂”好菌”、饿”坏菌”
饮食是塑造口腔菌群最强大的日常力量之一。
✔控糖,尤其是减少游离糖的摄入频率:致龋菌的”燃料”是糖,而且关键是“频率”而非”总量”——一天喝一杯含糖饮料,比一次性吃很多糖更伤牙,因为每次摄糖后菌斑 pH 会低于 5.5 持续 20–30 分钟。建议减少含糖饮料、甜食、零食,摄糖后及时漱口。
✔增加膳食纤维: 蔬菜、全谷物等富含纤维的食物需要充分咀嚼,能刺激唾液分泌、机械清洁牙面,同时纤维发酵产物有利于有益菌。唾液本身含缓冲物质(碳酸氢盐)和抗菌蛋白(sIgA、乳铁蛋白、溶菌酶),是天然的”护牙液”。
编辑
✔适量摄入发酵食品:无糖酸奶、纳豆、泡菜等发酵食品含活菌,对口腔和肠道菌群都有正向调节作用。罗伊氏乳杆菌偏少,适量摄入发酵乳制品是天然的补充途径。
✔硝酸盐丰富的蔬菜:菠菜、芹菜、甜菜根等富含硝酸盐,口腔里的奈瑟菌、韦荣氏菌能将其还原为亚硝酸盐来抑制致病菌并有益于心血管健康。
硝酸盐在口腔和全身健康中的作用示意图
编辑
Washio and Takahashi, 2025
✔避免长期饮酒和过烫饮食:酒精改变口腔 pH、抑制唾液分泌、促进念珠菌增殖;过烫饮食损伤黏膜屏障,为细菌入血创造条件。
✔多酚和类黄酮:最近的证据表明,食物来源的天然产品,尤其是多酚和类黄酮,作为P. gingivalis毒力因子的强效抑制剂,专门针对牙龈蛋白酶(Rgp和KGP)以减弱细菌的致病性。这些化合物不仅抑制细菌生长和生物膜形成,还通过干扰膜结合的特异性转运酶破坏能量代谢。
✔姜黄素:作为一种多酚化合物,具有抗炎、抗氧化、抗菌特性。它通过调节关键的炎症通路(如NF-κB)和氧化应激反应,展现出对多种口腔疾病的治疗潜力,如牙周病、龋齿、复发性口腔炎等。
编辑
DOI:10.3389/FPHAR.2025.1661443
全身健康协同:口腔不是孤岛
✔戒烟:吸烟是牙周炎最重要的可控危险因素,会显著改变菌群结构、抑制免疫、减少牙龈血流。戒烟后,牙周治疗效果和菌群恢复都会明显改善。
✔控制血糖:糖尿病患者唾液葡萄糖升高,为致龋菌和念珠菌提供”养料”,同时微血管病变削弱牙周组织修复。控制血糖是糖尿病合并牙周炎的”双线作战”。
✔管理压力与睡眠:长期压力和睡眠不足会降低 sIgA 和唾液分泌、改变菌群组成。虽然证据等级需审慎看待,但压力管理对口腔和全身菌群都有益。
✔谨慎使用抗生素:避免无指征使用广谱抗生素,必要时配合益生菌,减少对口腔和肠道菌群的”误伤”。
注意:不同人群的“菌群干预重点”并不一样
编辑
定期复测:形成管理闭环
干预不是一次性的,需要”检测→干预→复测→调整”的闭环。建议干预 3–6 个月后复测一次,重点看:超标致病菌倍数是否下降、有益菌是否恢复、风险评分是否降低。如果数字改善,说明方向正确;如果未改善,则需调整干预策略或寻求进一步专科治疗。
口腔菌群检测的真正价值,不是制造新的焦虑,也不是让人执着于某一个菌名或一个百分比,而是帮助我们换一种视角理解口腔健康。过去,我们只问:有没有蛀牙?牙龈有没有出血?口气重不重?
未来,我们还应关注:
当然,检测不是给健康贴标签,更不是替代牙科检查的“万能答案”。其价值在于风险评估与健康管理,并应与牙周探诊、口腔影像、龋病检查及必要的全身检查相结合。重点不在于报告中有多少陌生菌名,而在于能否据此采取行动:科学刷牙和使用牙线,做好舌苔与牙缝清洁,减少频繁摄糖,及时接受专业牙周治疗,并将口腔健康纳入整体健康管理。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Guo ZL, Cui MW, Dong YL, Wang S. The oral microbiome as a regulatory hub for systemic health: a systematic review of mechanistic links and clinical implications. J Oral Microbiol. 2026 Mar 3;18(1):2635233.
Liu S, Wang S, Zhang N, Li P. The oral microbiome and oral and upper gastrointestinal diseases. J Oral Microbiol. 2024 Jun 3;16(1):2355823.
Rajasekaran JJ, Krishnamurthy HK, Bosco J, Jayaraman V, Krishna K, Wang T, Bei K. Oral Microbiome: A Review of Its Impact on Oral and Systemic Health. Microorganisms. 2024 Aug 29;12(9):1797.
Bostanghadiri N, Kouhzad M, Taki E, Elahi Z, Khoshbayan A, Navidifar T, Darban-Sarokhalil D. Oral microbiota and metabolites: key players in oral health and disorder, and microbiota-based therapies. Front Microbiol. 2024 Aug 20;15:1431785.
Baker JL, Mark Welch JL, Kauffman KM, McLean JS, He X. The oral microbiome: diversity, biogeography and human health. Nat Rev Microbiol. 2024 Feb;22(2):89-104.
Xiao J, Fiscella KA, Gill SR. Oral microbiome: possible harbinger for children’s health. Int J Oral Sci. 2020 Apr 30;12(1):12.
Chandra Nayak S, Latha PB, Kandanattu B, Pympallil U, Kumar A, Kumar Banga H. The Oral Microbiome and Systemic Health: Bridging the Gap Between Dentistry and Medicine. Cureus. 2025 Feb 12;17(2):e78918.
Belibasakis GN, Bostanci N, Marsh PD, Zaura E. Applications of the oral microbiome in personalized dentistry. Arch Oral Biol. 2019 Aug;104:7-12.
Krishnan K, Chen T, Paster BJ. A practical guide to the oral microbiome and its relation to health and disease. Oral Dis. 2017 Apr;23(3):276-286.
Burcham ZM, Garneau NL, Comstock SS, Tucker RM, Knight R, Metcalf JL; Genetics of Taste Lab Citizen Scientists. Patterns of Oral Microbiota Diversity in Adults and Children: A Crowdsourced Population Study. Sci Rep. 2020 Feb 7;10(1):2133.
Zaura E, Pappalardo VY, Buijs MJ, Volgenant CMC, Brandt BW. Optimizing the quality of clinical studies on oral microbiome: A practical guide for planning, performing, and reporting. Periodontol 2000. 2021 Feb;85(1):210-236.
谷禾健康
很多克罗恩病患者都有过相似的困惑:炎症指标似乎有所下降,腹痛和腹泻却不一定完全好转;又或者明明已经规律治疗,吃东西后仍容易胀痛,肠道慢慢变得狭窄。这样的经历并不意味着患者做得不够好。而是克罗恩病涉及免疫、肠黏膜屏障、遗传、环境及肠道微生物等多重因素,而肠道纤维化正是其中最令人棘手的环节之一。
可以把肠道想象成一条既要消化食物、又要维持屏障功能以抵御细菌和外界刺激的长廊。它的内壁需要足够柔软,才能随着食物通过而舒张;也需要足够坚固,才能把细菌和外界刺激挡在合适的位置。反复炎症就像反复受伤。正常的修复本应在伤口愈合后慢慢停下,但当修复信号持续存在时,组织会不断沉积类似“疤痕”的细胞外基质,肠壁逐渐变厚、变硬,甚至形成狭窄——这一过程就是肠道纤维化。
越来越多的实验和临床线索提示,微生物失调可能通过多条路径参与肠道纤维化进程。在克罗恩病(CD)中,常可观察到微生物多样性下降、部分促炎相关菌群相对增多,以及产短链脂肪酸、支持屏障功能的菌群减少。此类改变并不意味着某一种细菌能够单独导致肠道纤维化,更可能反映了微生物、宿主免疫、屏障状态和局部组织环境之间失衡后的相互放大。
屏障受损后,脂多糖、鞭毛蛋白和细胞壁成分等微生物信号更容易接触肠壁深层细胞,并通过Toll样受体、NOD样受体等模式识别通路激活上皮细胞、成纤维细胞及免疫细胞;随后,TGF-β、TL1A/DR3、IL-33/ST2、IL-6/STAT3等信号可推动成纤维细胞活化和细胞外基质沉积。与此同时,微生物还可通过影响巨噬细胞极化、T细胞反应、氧化应激和肠系膜脂肪重塑,构建持续存在的促纤维化微环境。
尤其是黏附侵袭性大肠杆菌(AIEC)等特定菌株,因其黏附上皮、侵入细胞、形成生物膜及维持慢性刺激的能力,常在CD狭窄相关病灶中受到关注。微生物代谢物同样可能是连接菌群与肠壁重塑的重要媒介:短链脂肪酸具有维持屏障和调节免疫的潜在保护作用,而L-天冬氨酸、三甲胺及氧化应激相关信号则被视为值得进一步验证的促纤维化线索。
本文围绕克罗恩病肠道纤维化与肠道微生物组的关系,概述纤维化的病理基础及其与慢性炎症的联系,分析微生物失调、屏障损伤、免疫异常、爬行脂肪和代谢物改变在纤维化中的作用,并讨论AIEC等潜在致病菌及关键宿主信号通路。进一步评估饮食和代谢调节、功能菌干预、粪便微生物移植、抗黏附治疗及宿主信号靶向等策略的潜力与局限。肠道微生物群是理解CD纤维化的重要线索和潜在靶点,而非单一病因或成熟疗法;未来仍需高质量临床研究明确患者分型、作用机制及获益人群,以推动精准、安全的抗纤维化治疗。
什么是克罗恩病肠道纤维化?
克罗恩病中的肠道纤维化,是肠道在长期、反复炎症损伤后发生的异常修复过程:成纤维细胞和肌成纤维细胞持续被激活,产生并沉积过多胶原蛋白、纤维连接蛋白等细胞外基质,使肠壁逐渐增厚、变硬、失去弹性,并最终造成肠腔狭窄、梗阻。
关于肠道狭窄机制的原理图
编辑
doi: 10.1177/17562848221104951.
纤维化不是一次炎症,而是修复失控
肠道纤维化,可以从一个贴近生活的角度理解:皮肤擦伤后,身体会启动修复:先止血,再清理受损组织,随后长出新的组织。大多数时候,伤口会慢慢收口,修复程序也会逐步关闭。肠道的修复过程同样如此,只是它面对的环境更加复杂:肠腔里持续有食物、细菌和代谢物通过,肠壁每天都要经历伸缩和摩擦。当炎症反复出现,修复系统就可能长期处在“还没有结束”的状态,最终把本来灵活的肠壁修成了僵硬的狭窄段。
肠道纤维化的病理生理框架:超越慢性炎症
编辑
Kim JH,et al.Intest Res.2026
肠道纤维化的机制
克罗恩病相关肠道纤维化是一个复杂且动态的病理过程,涉及多种因素之间的相互作用与共同影响。深入理解这些因素及其作用机制,对于明确纤维化的发生发展,并开发更具针对性的治疗方法至关重要。
克罗恩病肠道纤维化的主要病理机制
编辑
doi: 10.3390/jcm14124060.
导致肠道纤维化的主要病理机制及因素
编辑
doi: 10.3390/jcm14124060.
(1)参与肠道纤维化的细胞
成纤维细胞、肌成纤维细胞、平滑肌细胞及巨噬细胞等共同参与纤维化。慢性炎症和生长因子刺激可促使这些细胞活化、增殖,并增加胶原等细胞外基质的生成。
活化的成纤维细胞可转化为表达α-SMA的肌成纤维细胞;狭窄部位的肌成纤维细胞更倾向于促进胶原沉积,且MMP3表达降低,不利于基质降解。平滑肌细胞增生、肥大及其与周围间充质细胞的相互作用,也会加重肠壁重塑。
(2)肠道纤维化的分子机制
IL-1、IL-4、IL-6、IL-13、IL-17和IL-33等促炎、促纤维化细胞因子,可促进成纤维细胞活化、上皮—间充质转化及胶原沉积;IL-10、IL-22等则具有一定抗纤维化作用。
TGF-β是核心调节因子,可通过Smad2/3通路上调Ⅰ型胶原和纤维连接蛋白表达。PDGF、CTGF和bFGF进一步促进间充质细胞的迁移、增殖和基质合成。
(3)细胞外基质的改变
细胞外基质过度沉积是纤维化和狭窄形成的直接基础。慢性炎症下,胶原、纤维连接蛋白等成分持续累积;虽然基质金属蛋白酶(MMPs)参与基质降解,但其与基质金属蛋白酶组织抑制剂(TIMPs)之间的失衡总体倾向于减少基质降解、维持基质稳定。组织硬度增加又可刺激细胞继续沉积基质,形成正反馈。
(4)爬行脂肪的作用
爬行脂肪是肠系膜脂肪组织包绕病变肠段的表现,其中的脂肪细胞和免疫细胞可分泌IL-6、TGF-β、TNF-α等介质,招募巨噬细胞和T细胞,并促进细胞外基质沉积。其与肠道炎症及细菌转位相互作用,持续维持局部促炎和促纤维化环境。
注:爬行脂肪(creeping fat)是克罗恩病的典型肠系膜改变,指肠系膜脂肪组织异常增生,并逐渐向病变肠段表面延伸、包裹肠壁,有时可覆盖肠道周径的50%以上。
(5)肠道微生物群与肠道纤维化
肠道菌群失调和屏障损伤可使细菌成分进入肠壁,通过TLR、NOD2和NF-κB等通路激活免疫细胞及肌成纤维细胞。AIEC可借助炎症环境持续定植,并通过IL-33/ST2等信号促进纤维化。
菌群代谢异常,尤其是产短链脂肪酸菌减少,也可能削弱屏障保护和免疫调节,从而促进纤维化进展。
谁在制造“疤痕”:成纤维细胞与肌成纤维细胞
狭窄肠段中存在不同的间充质细胞亚群,其中部分细胞表现出较强的促纤维化特征;单细胞研究还提示,某些成纤维细胞亚群与细胞外基质重塑相关。这说明纤维化并不是一群完全相同的细胞在做同一件事,而是多个细胞群体在不同位置、不同时间共同参与。
• 成纤维细胞:它们负责合成胶原蛋白、纤维连接蛋白等细胞外基质,并参与组织修复。
• 肌成纤维细胞:既制造基质,也产生收缩力,改变局部组织结构。短期活化有助于修复,但长期活化可能使肠壁增厚、变硬并收紧,促进狭窄形成。
✔ 对患者而言,这个认识有一个重要意义:未来治疗未必只是“全面抑制成纤维细胞”。更理想的方向可能是识别真正处于异常活化状态的细胞,阻断它们收到的错误信号,同时保留正常修复所需要的能力。
细胞因子是“传递信号”
肠道细胞并非独立运作,而是通过细胞因子传递信息,识别损伤、招募免疫细胞并启动修复。
• 转化生长因子β1(TGF-β1):在纤维化过程中,转化生长因子β1(TGF-β1)是重要的促纤维化信号,可促进肌成纤维细胞活化,增加胶原蛋白及其他基质成分的合成。
资料显示,Th2和Th17的免疫环境相关信号、IL-6/STAT3、TL1A/DR3及IL-33/ST2通路也可能参与促纤维化网络。各通路并非彼此孤立,可能相互放大,并在不同模型和病程阶段发挥不同作用。
✔ 注意:某条通路在实验中有效,并不意味着它是所有患者的“总开关”。关键在于明确不同患者、病程阶段和组织环境中的主导信号,并评估阻断该信号的获益与风险。
组织变硬会反过来加剧纤维化
纤维化还有一个容易被忽略的特点:它可能形成自我强化的循环。细胞外基质沉积增多后,组织会变得更硬。细胞能够感知周围环境的硬度,并通过机械敏感信号改变自己的形态、黏附和增殖状态。处在较硬基质上的成纤维细胞,可能更容易维持活化状态,继续制造更多基质。
基质变硬增强局部黏附、增殖和促纤维化
研究指出,基质刚度变化可增强局部黏附、增殖和促纤维化信号,并帮助解释为什么某些狭窄即便在炎症活动减少后仍可能持续。TGF-β/Smad信号、机械敏感通路以及肠平滑肌和肠系膜脂肪之间的联系,都可能参与这一自我强化过程。
表观遗传改变:细胞记住“曾经损伤”
狭窄部位的肌成纤维细胞还可能发生更深层的分子重塑。所谓表观遗传,可以简单理解为细胞在不改变基因顺序的情况下,改变某些基因的开关状态。经历长期炎症和机械刺激后,细胞可能更容易打开促纤维化程序,也更难回到安静状态。
Smad7减少会使纤维化更容易持续
狭窄来源的肌成纤维细胞存在增强的TGF-β信号、较高的相关转录活动以及Smad7减少等变化。Smad7通常能够对TGF-β受体下游信号起到一定的抑制作用,因此其减少可能使促纤维化反应更容易持续。
纤维化并不只是“炎症还在不在”的问题,也可能是细胞状态已经被重新编程。未来如果能够让这些细胞重新获得停止修复、清除多余基质的能力,或许比单纯压制某一个炎症指标更能解决问题。
给患者的启发:不要把复杂病程全归咎于个人生活习惯
肠道纤维化是持续损伤、异常修复、细胞因子网络和组织硬化共同作用的结果。它与炎症相连,却不等同于炎症;需要同时关注免疫控制和组织重塑。
患者很容易产生自责:是不是自己吃错了?或者运动不够、作息不好,才让病情越来越复杂?
生活方式确实会影响整体健康和疾病管理,但肠道纤维化是多因素过程,涉及遗传易感、免疫调控、屏障状态和组织反应,不能简单归结为个人“做得不对”。
更合理的做法,是把可以控制的事情做好:按医嘱治疗,关注症状变化,接受必要的影像和内镜评估,保持适合自身耐受的营养摄入,并在出现梗阻风险信号时及时就医。
上一章讲了“肠壁为何变硬”,本章进一步探讨肠道微生物组参与其中的途径。目前较清晰的框架分为三层:第一,肠壁细胞直接感知微生物信号;第二,上皮细胞与免疫细胞接力,将局部刺激放大为炎症和修复信号;第三,微生物代谢物及组织外环境的变化,使这种反应持续存在。
肠道微生物群影响肠道成纤维细胞的机制
编辑
doi: 10.3389/fmed.2022.826240.
第一条路径:成纤维细胞直接识别微生物成分
人们通常认为,只有免疫细胞能识别微生物。实际上,肠道肌成纤维细胞等间充质细胞也表达多种模式识别受体,可识别脂多糖、鞭毛蛋白等微生物相关分子模式。LPS/TLR4、鞭毛蛋白/TLR5和PG-PS/NOD2/TLR2等信号轴,可能促进成纤维细胞活化及细胞外基质(ECM)重塑。
微生物失调介导的肠道屏障破坏和纤维化途径激活
编辑
Kim JH,et al.Intest Res.2026
LPS/TLR4信号促进促纤维化细胞因子释放
肠道肌成纤维细胞中的 LPS/TLR4 信号可激活 NF-κB,促进促纤维化因子释放和细胞外基质(ECM)生成;同时抑制 Smad7、TGF-β1 诱饵受体等负调控因子,间接放大 TGF-β 信号,从而加剧纤维化。
LPS–TLR4信号通过直接和间接机制促进纤维生成
编辑
Kim JH,et al.Intest Res.2026
此外,LPS 还可通过非 TGF-β 依赖机制直接诱导人类成纤维细胞表达胶原基因,显示其自身具有促纤维化作用。
鞭毛蛋白产生菌对促纤维化刺激有重要影响
鞭毛蛋白/TLR5信号是另一条独立于TGF-β的促纤维化通路。在人肠间质细胞(HIMFs)中,鞭毛蛋白通过TLR5/MyD88/PI3K/AKT/mTOR通路诱导ECM蛋白生成,并与TGF-β1协同作用。体内研究显示,α-SMA⁺细胞缺失MyD88可显著减轻肠道纤维化,凸显该通路的重要性。
鉴于肠道微生物组持续存在,且克罗恩病(CD)中鞭毛蛋白产生菌(如大肠杆菌和沙门氏菌)相对富集,鞭毛蛋白可能是持续存在且与疾病相关的促纤维化刺激。
✔ 保护屏障对阻断纤维化非常重要
只要微生物成分越过受损屏障,接触到组织深层,就有可能成为这些细胞接收到的外部信号。因此,保护屏障和减少异常暴露,可能是阻断纤维化的重要前置环节。
第二条路径:上皮细胞受刺激后把信号传给成纤维细胞
肠上皮细胞位于肠腔和身体组织之间,是微生物信号最早接触到的界面之一。它们受到刺激后,会释放细胞因子、趋化因子和氧化应激相关信号,影响周围的免疫细胞与间充质细胞。于是,微生物不必直接作用于成纤维细胞,也可能通过上皮细胞完成“间接转接”。
直接和间接微生物组驱动的纤维化通路
编辑
Kim JH,et al.Intest Res.2026
侵袭性病原菌可诱导上皮产生促纤维化信号
某些侵袭性微生物(如Shigella flexneri strain M90T)可诱导上皮细胞产生IL-6等促纤维化相关信号;炎症因子组合也可能上调上皮细胞中的TGF-β表达,随后使肌成纤维细胞增加胶原产生。
此外,活性氧可促进细胞外基质沉积,并通过TGF-β/Smad通路推动纤维化反应。
编辑
Kim JH,et al.Intest Res.2026
若上皮损伤持续存在,这些信号可能长期增强,导致炎症反应持续及组织修复异常。因此,修复上皮屏障与控制炎症并非相互替代,而是需要协同进行。
第三条路径:巨噬细胞把短暂刺激变成长时间的修复信号
巨噬细胞既参与损伤清除,也参与组织修复,并会随微环境改变功能状态。部分状态偏向防御,另一些则偏向修复与重塑;若修复反应持续过久,可能释放过量TGF-β等信号,促进成纤维细胞产生细胞外基质。
M2巨噬细胞有时会促进肠道纤维化
M1巨噬细胞通常是促炎的,由Th1细胞因子如TNF-α和IFN-γ诱导,而M2巨噬细胞则表现出抗炎和促纤维化特性,由Th2细胞因子IL-4和IL-13促进。
M2巨噬细胞主要通过释放TGF-β来促进纤维化。此外,M2巨噬细胞可以招募Th2淋巴细胞,进一步增强纤维生成信号。一项最新研究表明,凋亡的肠上皮细胞诱导M2巨噬细胞中Mer受体酪氨酸激酶(MerTK)/细胞外信号调节激酶(ERK)通路的激活,导致TGF-β1分泌、成纤维细胞激活和细胞外基质(ECM)产生,最终促进克罗恩病中的肠道纤维化。
注:不过,M2巨噬细胞在肠道纤维化中的具体作用仍待明确,不能将“M2”简单视为单一、固定的细胞类型。
微生物组还可能通过调节T细胞和抗原呈递细胞,将局部反应扩展至更广泛的免疫网络。例如,口腔来源细菌、牙周炎症与Th17反应的联系提示,不同部位的微生物群及免疫状态可能相互影响;抗原呈递细胞产生的TL1A则可能增强T细胞活化,并进一步作用于表达DR3的成纤维细胞。
编辑
Kim JH,et al.Intest Res.2026
粘附侵袭性大肠杆菌,值得重点关注
粘附侵袭性大肠杆菌(AIEC)在克罗恩病肠道纤维化中值得重点关注,主要基于以下几点:
①与狭窄型病变密切相关:AIEC常在克罗恩病狭窄病灶中检出,黏膜阳性率约为21%~62%,提示其可能参与纤维狭窄形成,而不仅是炎症的伴随现象。
②具有黏附、侵袭和持续定植能力: AIEC可通过FimH与上皮细胞CEACAM6结合,优先定植于回肠黏膜;同时能够破坏上皮屏障并侵入黏膜,增加肠壁暴露于细菌及其组分的机会。
③可直接触发促纤维化信号: AIEC来源的LPS和鞭毛蛋白可分别激活TLR4、TLR5等模式识别受体,诱导NF-κB、PI3K/AKT/mTOR及IL-33/ST2等通路,促进成纤维细胞活化、胶原蛋白和ECM生成。其中部分作用可独立于TGF-β,说明AIEC可能通过多条机制推动纤维化。
④连接上皮、免疫与间充质反应: AIEC鞭毛蛋白可增强上皮细胞IL-33/ST2信号;同时,AIEC还能刺激CX3CR1⁺抗原呈递细胞产生TL1A,进一步激活T细胞及DR3⁺成纤维细胞,形成持续的促纤维化网络。
⑤具有明确的精准干预价值: AIEC存在菌株异质性,适合开展个体化检测和治疗。阻断FimH介导的黏附、破坏生物膜、使用噬菌体或细菌素选择性清除AIEC,可能成为针对微生物—纤维化轴的治疗策略。但目前相关证据仍以机制研究和动物实验为主,临床有效性有待进一步验证。
AIEC菌株在肠道中的持续定植会促进肠道纤维化
编辑
doi: 10.3389/fmed.2022.826240.
微生物移位:肠道屏障失守及其向肠系膜的延伸
屏障受损时,活菌或微生物成分可由肠腔进入黏膜深层,甚至抵达肠系膜脂肪组织,这一过程称为微生物转位。由此,肠系膜脂肪组织可能持续暴露于微生物信号,成为肠道炎症和纤维化反应的参与者。
肠系膜脂肪组织可识别脂多糖(LPS)、鞭毛蛋白等病原体相关分子模式(PAMP),并通过TLR、NLR等先天免疫通路持续响应,进而影响巨噬细胞状态、脂肪组织重塑及平滑肌反应,可能构成“爬行脂肪”与肠道纤维化之间的联系。
因此,肠道纤维化是肠腔、肠壁、免疫细胞、脂肪组织及微生物代谢物相互作用的结果。干预可能需要同时减少异常微生物信号转位、维护肠道屏障,并阻断不同组织间的促炎和促纤维化放大效应。
很多人提到肠道疾病时,首先想到的是肠腔和肠黏膜。但在克罗恩病中,肠道周围的肠系膜脂肪组织也可能发生明显变化。它不再只是被动包裹肠管的“填充物”,而可能参与免疫反应、脂肪代谢和组织重塑。
临床上常用“爬行脂肪”描述包绕炎症肠段、沿肠管分布的肠系膜脂肪改变。
脂肪组织也是会“说话”的器官
脂肪细胞能够释放脂肪因子、细胞因子、脂肪酸和生长因子。正常情况下,这些信号参与能量储存和组织稳态。
肠系膜脂肪驱动炎症纤维化
当肠道长期炎症、微生物成分进入肠系膜后,脂肪组织的细胞组成和分泌模式可能改变。它们释放的介质会作用于邻近肠壁,影响免疫细胞、平滑肌细胞和成纤维细胞。
研究发现,微生物对肠系膜脂肪组织中的脂肪细胞和前脂肪细胞的刺激,可能有助于爬行脂肪形成以及克罗恩病肠道纤维化发展。病变脂肪组织可出现成熟脂肪细胞减少、前体细胞增多、促炎介质增加和成纤维细胞样细胞扩增等变化。
编辑
Kim JH,et al.Intest Res.2026
✔ 提示:
因此,当患者看到影像报告或手术记录中提到肠系膜改变时,不必把它理解成与肠道完全无关的“附带现象”。它可能反映的是肠壁和周围组织正在共同应对长期炎症。当然,具体意义仍需结合影像、内镜、病理和临床表现判断,不能仅凭一个描述就推断疾病一定会如何发展。
脂肪组织可能转向成纤维细胞样状态
研究显示,脂肪细胞具有一定可塑性。在微生物刺激、炎症及TGF-β等信号作用下,成熟脂肪细胞可能去分化为前体样细胞,并进一步转化为具有肌成纤维细胞特征的细胞,直接参与细胞外基质生成。DPP4相关前体细胞和TGF-β信号可能是这一过程的重要线索。
这意味着,脂肪组织中的纤维化细胞来源可能比过去认识的更复杂,不一定仅来自传统成纤维细胞。就像原本用于储存能量的仓库,在长期炎症刺激下,部分细胞可能转而参与组织“加固”;短期有助于维持结构,长期却可能使周围组织变得狭窄、僵硬。
“爬行脂肪”可能形成肠壁外的放大回路
肠系膜脂肪组织受到微生物信号和炎症介质激活后,可能释放更多促炎因子,增强M2样巨噬细胞、Th1/Th17反应及平滑肌改变。
M2a巨噬细胞极化促进成纤维细胞激活和爬行脂肪形成
编辑
Kim JH,et al.Intest Res.2026
肠腔、肠壁与脂肪组织相互促纤维化
肠壁炎症又会进一步损伤屏障,使更多微生物成分接近肠系膜,进而形成肠腔、肠壁与脂肪组织相互促进的恶性循环。
此外,炎症肠段平滑肌细胞释放的纤维连接蛋白等信号,可能促进前脂肪细胞迁移;当组织力学环境改变、Hippo等通路失衡时,脂肪细胞也更易转化为促纤维化细胞。
注:Hippo信号通路是一条在进化上高度保守的激酶信号转导通路。
这并不意味着“脂肪越多,纤维化越严重”,也不能用单纯减重替代克罗恩病治疗。关键在于组织微环境和细胞功能,而非体重本身。临床上更重要的是识别肠系膜脂肪释放的促病信号,并在保护正常组织功能的前提下,阻断其与肠壁之间的异常联系。
如果说微生物是肠道中的“居民”,那么微生物代谢物就是它们持续发出的化学信号。不同菌群利用膳食纤维、蛋白质、胆碱、磷脂酰胆碱和L-肉碱等原料后,会产生不同物质。这些代谢物不仅能作用于肠上皮细胞,还会影响巨噬细胞、T细胞、成纤维细胞和肌成纤维细胞;当肠屏障受损时,它们还可能进入肠壁深层组织,甚至进入全身循环。
因此,判断微生物组的意义,不能只看“有哪些菌”,还要关注“这些菌正在产生什么”?相同的菌群数量,在不同饮食、炎症和宿主代谢环境下,可能产生不同的功能结果。代谢物正是连接微生物与宿主的重要中间层。
肠腔狭窄、腹胀人群摄入纤维需注意
短链脂肪酸(SCFAs)主要包括乙酸盐、丙酸盐和丁酸盐,通常由肠道细菌发酵膳食纤维产生。其中,丁酸盐是结肠上皮细胞的重要能量来源,也是目前研究最充分的保护性代谢物之一。
与丁酸生成相关的菌群包括:
粪杆菌属,尤其是普拉梭菌(Faecalibacterium prausnitzii);
罗氏菌属(Roseburia);
真杆菌属(Eubacterium);
厌氧棒菌属(Anaerostipes);
粪球菌属(Coprococcus);
罕见小球菌属(Subdoligranulum);
厌氧丁酸菌属(Anaerobutyricum);
以及部分 Romboutsia、Anaerotruncus 和 Lachnospiraceae_NK4A136 group。
在克罗恩病相关的菌群失调和纤维化表型中,上述部分产短链脂肪酸菌群可能减少,尤其是普拉梭菌和部分毛螺菌科成员。它们的减少可能意味着肠道发酵膳食纤维、维持屏障和调节免疫的能力下降。
丁酸盐可能通过多条路径发挥保护作用
(1)丁酸盐可被肠上皮细胞利用:支持上皮细胞的能量代谢和修复。它还可能促进紧密连接蛋白和黏液屏障相关功能,帮助减少肠腔内微生物成分向固有层和肠系膜转移。
(2)丁酸盐能够抑制组蛋白去乙酰化酶:改变部分炎症和免疫相关基因的表达。通过这一机制,它可能促进调节性T细胞(Treg)分化,帮助恢复Th17/Treg之间的平衡,降低持续性免疫激活。
(3)短链脂肪酸可影响巨噬细胞的功能状态:部分研究提示,丁酸和相关产物有助于诱导具有抗炎或组织修复特征的巨噬细胞亚型,并促进IL-10等调节性因子产生。普拉梭菌及其代谢物还可能抑制Th17反应,从而减少IL-17对肌成纤维细胞的刺激。
(4)短链脂肪酸可能直接或间接影响成纤维细胞:它们一方面减少上皮损伤和炎症介质释放,另一方面可能降低TGF-β、IL-6等促纤维化信号的持续刺激,从而减少胶原蛋白和其他细胞外基质的异常沉积。
并非所有人都适合增加纤维摄入来补充短链脂肪酸
需要注意的是,这些保护作用主要来自细胞、动物和部分转化研究。即使短链脂肪酸具有潜在益处,也不代表患者都适合立即大量增加粗纤维或自行服用丁酸盐补充剂。
对于已经存在肠腔狭窄、腹胀、腹痛或梗阻风险的人群,过多不易消化的膳食纤维反而可能增加不适。饮食调整应结合疾病活动度、狭窄位置、营养状态和个人耐受性进行。
L-天冬氨酸:肠道狭窄的促纤维化候选物
与短链脂肪酸不同,L-天冬氨酸可能代表一类具有促纤维化作用的代谢信号。多组学研究发现,L-天冬氨酸水平与克罗恩病肠道狭窄或纤维化程度存在相关性,其来源可能涉及Saccharimonadales等微生物类群。
L-天冬氨酸能驱动肠壁纤维化
在体外实验中,L-天冬氨酸能够刺激人肠道肌成纤维细胞,诱导促纤维化基因表达;在动物模型中,它也可能加速细胞外基质沉积和肠壁纤维化。这提示,某些氨基酸代谢变化可能不仅是炎症的伴随现象,还可能直接参与成纤维细胞的功能改变。
其可能的过程包括:
目前,抑制L-天冬氨酸的合成、转运或细胞摄取被视为潜在研究方向。但“代谢物升高”“能够影响细胞”和“针对它治疗能够改善患者狭窄”是三个不同层次的问题,现有证据尚不足以支持患者自行通过饮食或补充剂降低L-天冬氨酸。
三甲胺:可能在不同组织中影响纤维化
三甲胺(TMA)和三甲胺-N-氧化物(TMAO)体现了“微生物—肝脏—宿主”共同决定代谢物效应的过程。
TMA与TMAO影响纤维化的多重因素
TMA和TMAO在不同组织纤维化研究中被认为可能通过氧化应激、TGF-β/Smad3、NLRP3炎症小体和PERK-mTOR等路径影响纤维化;材料同时指出,克罗恩病患者的TMA和TMAO变化可能存在复杂性,不能简单以“越高越坏”概括。最终效应取决于:
这表明,代谢物水平不仅取决于菌群,还受饮食原料、微生物加工、肝脏转化及宿主清除能力共同影响。因此,未来的代谢物干预需综合考虑饮食、菌群和宿主代谢,而不能仅依赖单一益生菌或保健品。
氧化应激:不利代谢环境如何反过来改变菌群
肠道炎症不仅改变菌群组成,也会改变肠道的氧化环境。炎症细胞和肠上皮细胞可产生过量活性氧(ROS),使肠腔和黏膜局部处于更强的氧化应激状态。
炎症氧化应激驱动产丁酸菌流失
这种环境对严格厌氧的产丁酸菌并不友好。例如,罗氏菌属和臭气杆菌属(Odoribacter)可能因氧化压力增加而减少;而菌群保护功能下降后,屏障修复能力进一步减弱,形成恶性循环。
研究还提示,P2X7受体可能是连接炎症、氧化应激和菌群变化的关键节点。P2X7受体被激活后,可促进NLRP3炎症小体活化并增加ROS生成,进一步推动IL-1β等炎症信号释放。炎症和氧化应激增强后,又可能加剧产丁酸菌的流失。
这一过程可以概括为:炎症增强 → P2X7受体激活 → NLRP3炎症小体和ROS增加 → 产丁酸菌减少 → 屏障功能下降 → 微生物及其产物转位增加 → 炎症和纤维化进一步加重。
相反,抑制P2X7/NLRP3轴、增强Nrf2等抗氧化防御通路,理论上可能减轻氧化环境,为有益厌氧菌恢复创造条件。但这目前仍主要属于机制研究和早期转化方向,并不意味着患者可以自行使用相关抑制剂或抗氧化补充剂。
色氨酸代谢物:吲哚、AHR与肠屏障修复
色氨酸是另一类重要的微生物代谢底物。部分肠道细菌能够将色氨酸转化为吲哚及其衍生物,包括吲哚-3-乙酸、吲哚-3-醛等。这些物质可以作用于芳香烃受体(AHR),影响上皮屏障和黏膜免疫。
色氨酸代谢物促进肠屏障保护
拟杆菌属的脆弱拟杆菌(Bacteroides thetaiotaomicron)被认为具有利用膳食色氨酸产生吲哚类物质的能力。吲哚激活AHR后,可能进一步影响Nrf2相关抗氧化通路,并促进:
当屏障得到改善时,脂多糖、鞭毛蛋白、细菌细胞壁片段以及其他促炎代谢物就不容易进入肠壁深层,从而间接减少成纤维细胞、巨噬细胞和T细胞受到的刺激。
注:目前,这一方向的研究重点不是单纯增加色氨酸摄入,而是探索“富含色氨酸的饮食+能够稳定产生有益吲哚代谢物的菌株”是否能够形成更可靠的屏障保护效果。对于克罗恩病患者,饮食和补充剂仍应根据疾病活动、肠道狭窄和营养状况个体化调整。
从“菌名检测”走向“功能检测”
传统菌群检测通常回答的是:某个菌属增加了,另一个菌属减少了。但对于肠道纤维化而言,更关键的问题可能是:
因此,未来更有价值的检测可能不是单纯列出“有哪些菌”,而是把宏基因组、代谢组、炎症指标、影像学和内镜结果结合起来,判断微生物组的实际功能。
一份报告即使显示某些“有益菌”减少,也不能直接预测患者一定会发生狭窄;同样,某种代谢物升高也不能单独作为纤维化诊断依据。只有当代谢物变化与症状、炎症活动、影像学狭窄和组织表现相互印证时,才可能真正帮助临床决策。
关于肠道微生物组与纤维化的许多认识,来自细胞实验、动物模型、患者组织和血清标志物研究。每一类证据都像一块拼图,但它们的强度和局限不同。理解证据如何一步步建立,可以帮助我们既看到研究前景,也不被“实验室有效”误导成“临床已经成熟”。
遗传线索: NOD2揭示宿主识别细菌的机制
资料显示,NOD2变异可能影响细菌成分识别,并与Paneth细胞功能障碍相关。Paneth细胞分泌抗菌肽、维持上皮屏障;其功能异常可能改变肠道与微生物之间的距离及信号强度。Nature于2021年发表的研究进一步支持了NOD2与克罗恩病肠道纤维化之间的机制联系。
这一发现表明,疾病风险不仅取决于“有哪些菌”,还取决于宿主如何识别和处理它们。相同的微生物环境在不同遗传背景下,可能引发程度不同的反应。
抗微生物抗体:提示病程复杂,但不能单独诊断纤维化
研究发现,CBir1、OmpC和I2等抗微生物抗体可能与克罗恩病的复杂病程、狭窄或穿透表型及更高的手术风险相关,部分血清学变化甚至可能早于临床诊断出现。但需要明确的是,它们无法可靠地区分肠道纤维化与其他复杂疾病表现。
因此,这些指标应被视为风险线索,而非命运预测。检测结果异常可提示医生加强随访、进一步进行影像学评估或综合判断,但不能替代症状、内镜、影像和病理结果。患者也不应仅因一次异常检测,就认定自己必然需要手术。
细胞实验结果需谨慎外推至临床
将微生物成分加入培养的上皮细胞或成纤维细胞后,研究者可观察到NF-κB、TGF-β、ROS等信号变化。这类实验只能说明细胞能否响应某种刺激,无法确认患者体内是否存在相同浓度的刺激、刺激是否来自同一种细菌,或阻断该刺激能否带来临床获益。
研究指出,部分上皮细胞实验使用了永生化细胞,仍需通过原代细胞和体内研究进一步验证。明确实验局限,是保证科学可靠性的重要组成部分。
临床现实:炎症控制仍是基础
资料指出,肠道纤维化常导致狭窄,临床意义重大,而有效的抗纤维化疗法仍是未满足的需求。微生物组机制为超越传统免疫抑制提供了新思路,但许多靶点仍停留在细胞、动物或早期转化研究阶段。
对患者来说,这意味着不能因为微生物组研究出现新进展,就自行停用现有治疗或用未经验证的方法替代规范管理。现阶段最稳妥的策略仍是由消化科团队判断炎症活动、狭窄程度、营养状况和并发症风险;微生物组相关检测和干预,只有在明确目的、了解局限并与整体治疗计划协调时,才可能发挥更大价值。
纤维化并不只发生在克罗恩病患者肠道。它本质上是组织反复受损后,修复过程没有按时“刹车”:成纤维细胞和肌成纤维细胞持续活化,胶原等细胞外基质(ECM)过度沉积,原本柔软、有弹性的组织逐渐变厚、变硬、失去正常结构。长期进展可导致器官功能下降,甚至器官衰竭。
除肠道外,纤维化可累及几乎所有器官和组织,最常见、危害最大的包括以下几类。
肺
✔ 常见纤维化形式或相关疾病:
• 特发性肺纤维化(IPF);
• 尘肺;
• 部分间质性肺病;
• 系统性硬化症相关间质性肺病。
✔ 主要危害:
肺泡间隔增厚、肺组织变硬,气体交换受阻;出现进行性气短、干咳、活动耐量下降,严重时呼吸衰竭。
肝脏
✔ 常见纤维化形式或相关疾病:
• 慢性乙/丙型肝炎;
• 酒精相关肝病;
• 代谢功能障碍相关脂肪性肝炎(MASH)等所致肝纤维化。
✔ 主要危害:
肝脏结构被瘢痕组织重塑,进展后可形成肝硬化、门静脉高压、腹水、消化道出血、肝功能衰竭,并增加肝细胞癌风险。
心脏
✔ 常见纤维化形式或相关疾病:
• 高血压性心肌纤维化;
• 心肌梗死后瘢痕;
• 糖尿病或心肌病相关纤维化。
✔ 主要危害:
心肌变硬、舒张和收缩功能受损,导致心力衰竭;同时可干扰电信号传导,增加心律失常和猝死风险。
肾脏
✔ 常见纤维化形式或相关疾病:
• 肾小球硬化;
• 肾小管间质纤维化。
✔ 主要危害:
肾单位逐渐丢失,滤过能力下降,可出现蛋白尿、水肿、电解质紊乱和尿毒症;晚期可能需透析或肾移植。
其他
编辑
不同器官纤维化,为什么危害都很大?
不同部位表现不同,但核心危害相似:
(1)组织变硬、弹性下降
肺无法充分扩张,心脏无法舒张,肠道难以蠕动,皮肤和关节难以活动。
(2)正常结构被“瘢痕”取代
例如肝小叶、肾单位、肺泡和心肌结构被破坏后,即使炎症减轻,功能也未必能完全恢复。
(3)形成自我强化循环
纤维化组织越硬,机械张力越大,越容易进一步激活TGF-β等促纤维化信号;因此纤维化有时可在炎症相对平稳后仍继续进展。
(4)增加终末期器官衰竭风险
肺纤维化可发展为呼吸衰竭,肝纤维化可发展为肝硬化与肝衰竭,肾纤维化可发展为终末期肾病,心肌纤维化则与心力衰竭和恶性心律失常密切相关。
与肠道微生物群有什么联系?
肠道微生物群的影响并不局限于肠道。肠屏障受损、菌群失衡或微生物代谢异常时,细菌成分及代谢物可能进入门静脉或全身循环,影响远端器官的免疫、炎症和代谢环境。
✔ 注意:菌群改变通常是风险线索和潜在参与因素,而不是单一病因。肠道菌群检测可作为个体化风险评估和动态观察的补充,但是不能单独诊断某个器官是否纤维化,也不能替代影像、内镜、血液检查或病理评估。
当我们知道微生物组可能参与纤维化,下一步自然会问:能不能把它调回来?目前研究主要沿着四个方向展开:恢复有益的代谢功能,精准补充或移植微生物,针对特定病原菌及其毒力,直接阻断微生物与宿主之间的促纤维化信号。
它们都很有潜力,但距离成为稳定、普适的临床方案,仍然需要回答安全性、个体差异、持续时间和真实结局等问题。
恢复功能:纤维、益生菌与合生元
✔ 短链脂肪酸产生菌有助于减轻纤维化
研究发现,通过益生菌、膳食纤维或合生元补充短链脂肪酸产生菌群,可能帮助改善屏障和免疫环境;F. prausnitzii、Anaerotruncus和Lachnospiraceae_NK4A136等产短链脂肪酸相关类群被列为有前景的研究对象。
短链脂肪酸(SCFA)产生菌,如F. prausnitzii,在克罗恩病(CD)相关的菌群失调和纤维化表型中常显著减少;其及其代谢物可上调抗纤维化细胞因子(IL-10、IL-12),同时抑制Th17反应。
注:除了SCFAs,某些长链脂肪酸,如二十碳四烯酸,已显示出通过降低ECM基因表达和CD患者特异性类器官模型中的组织硬度而具有靶向抗纤维化效果。
这里的重点并不是寻找或追求一个“最强菌种”,而是尽可能恢复一组相互关联的肠道功能。理想状态下,肠道生态系统应具备处理膳食纤维、产生具有保护作用的代谢物、支持屏障完整性以及维持免疫耐受的能力。也就是说,关注的不只是某个菌是否增加,还包括整体菌群能否共同发挥这些功能,以及这些功能是否与患者的实际状态相匹配。
✔ 调控P2X7R轴重塑抗纤维化菌群生态
近期证据表明,P2X7受体(P2X7R)是连接菌群失调与纤维化的关键分子开关。激活P2X7R可诱导NLRP3炎症小体并增加活性氧生成,形成不利于Roseburia、Odoribacter等严格厌氧产丁酸菌生存的氧化环境;抑制或缺失P2X7R则能减轻氧化应激,恢复这些有益菌的生态位。
其中,Roseburia intestinalis可增强上皮屏障,并抑制IL-17、肿瘤生长因子M等促纤维化介质的分泌;Odoribacter splanchnicus则抑制Th17反应、促进Treg分化,其细胞外囊泡还能通过抑制NLRP3炎症小体进一步减轻黏膜损伤。因此,调控P2X7R/NLRP3轴以重塑抗纤维化微生物组,可能成为下一代治疗策略。
✔ 益生菌干预应注重个体化与安全性
不同患者在饮食耐受性、基础菌群组成和症状表现方面存在较大差异。因此,未来更可能采用分层设计,根据个体情况选择相应的饮食、益生菌或合生元策略,而不是让所有患者都使用完全相同的配方。即使某种组合在研究中显示出潜力,也不能简单推断其对每个人都具有相同效果。
在日常管理中,可以将饮食记录与症状记录结合起来,持续观察哪些食物在病情稳定期更容易耐受,哪些食物在症状加重时可能需要暂时调整。这样的记录有助于了解个人模式,但不等同于自行制定严格的长期饮食方案。
任何明显改变饮食结构,或长期使用益生菌、合生元及其他补充剂的决定,都应同时考虑肠道狭窄、营养不良和药物相互作用等问题,并与整体治疗安排保持协调。
粪菌移植:从“整体搬运”走向更精准的微生物组干预
粪便微生物移植常被探索用于恢复健康微生物,但疗效并不一致,该领域正向针对特定纤维生成通路的精确干预转变。
✔ 特定菌株精准靶向肠道抗纤维化治疗
最近的研究表明,口服给药F. prausnitzii或其细胞外囊泡通过优先诱导抗纤维化的M2b巨噬细胞极化而非促纤维化的M2a表型来缓解肠道纤维化。此外,Bacteroides thetaiotaomicron与F.prausnitzii的双重组合在恢复Th17/Treg平衡和刺激抗纤维化IL-10分泌方面显示出优于单药治疗的疗效。
B.thetaiotaomicron的治疗潜力源于其将膳食色氨酸代谢为吲哚的能力,吲哚是芳香烃受体(AHR)的配体。激活AHR-Nrf2轴通过上调紧密连接和粘蛋白基因增强上皮屏障,同时保护肠上皮细胞免受氧化应激和TNF诱导的细胞凋亡。此外,B.thetaiotaomicron衍生的代谢物抑制病原菌的生长。
未来肠道纤维化治疗应由传统粪菌移植转向精准微生物组干预。由于菌群定植受患者原有菌群、饮食、药物、炎症及免疫状态影响,且供体材料存在未知成分、安全性和标准化等问题,FMT难以实现稳定、可控的疗效。
更具前景的策略是采用经过筛选、定量和质量控制的功能组合,例如将富含色氨酸的饮食与B.thetaiotaomicron或吲哚衍生物结合,以强化肠黏膜屏障、抑制促纤维化病原体移位,并实现更具针对性的抗纤维化治疗。
针对AIEC驱动纤维生成的精准干预
✔ 通过分析患者的AIEC菌株进行个性化干预
粘附侵袭性大肠杆菌(AIEC)与克罗恩病相关的狭窄有关,患者的粘膜阳性率约在21%至62%之间。这种显著的患者间变异性和菌株异质性突显了AIEC作为克罗恩病中潜在精准医疗靶点的可能性。
在未来,针对患者特定的粪便或组织AIEC菌株进行分析,以识别促纤维化特征,可以实现个性化干预,例如阻止上皮细胞粘附、采用噬菌体疗法选择性消除特定患者的AIEC,或抑制促纤维化代谢物的合成。
✔ 精准靶向AIEC的抗纤维化策略
针对AIEC及其促纤维化作用,已有多种治疗策略正在探索。环丙沙星、利福昔明等抗生素的临床疗效有限;相比之下,短链烷基硼酸和细菌素等新型药物在临床前研究中可有效抑制AIEC生长与致病性。
噬菌体可识别细菌表面受体、注入遗传物质并裂解靶菌,因此个体化噬菌体鸡尾酒疗法有望选择性清除促纤维化AIEC。研究显示,含7种噬菌体的鸡尾酒可在体外清除多种AIEC菌株,并减轻小鼠结肠炎炎症;FimH抑制剂Sibofimloc通过阻断AIEC上皮黏附也显示出良好效果,但仍需进一步验证。
总体而言,精准微生物组干预有望控制AIEC阳性CD患者的纤维化。其临床常规应用仍需实现目标菌株的快速准确鉴定,并证实清除该菌株可改善炎症、狭窄及患者生活质量。
直接针对宿主信号:从TGF-β、TL1A到氧化应激
除了改变微生物本身,还可以阻断微生物信号进入宿主后的关键节点。研究方向包括TGF-β相关通路、TL1A/DR3、IL-33/ST2、IL-6/STAT3、NLRP3炎症小体、P2X7受体和氧化应激防御等。理论上,阻断这些通路可以减少成纤维细胞活化或改变免疫细胞状态。
✔ 精准调控抗纤维化信号平衡
研究证据提到,抑制TL1A或IL-33/ST2等信号在实验模型中可以减少纤维化,激活Nrf2等抗氧化防御也被视为潜在策略;但不同通路广泛参与免疫和组织稳态,靶向时需要平衡抗纤维化获益与感染、免疫抑制或其他副作用风险。
这也是为什么抗纤维化治疗不能只追求“越强越好”。肠道需要一定的免疫防御,也需要一定的修复能力。真正理想的治疗,是把失控的信号压回合理范围,而不是让肠壁失去所有反应能力。
未来可能是组合策略,而不是单一方案
克罗恩病纤维化的形成涉及微生物、屏障、免疫、脂肪组织、机械环境和遗传背景。只改变其中一层,可能不足以扭转已经形成的循环。未来的方案或许会根据病程阶段组合使用:在炎症活动期加强疾病控制,在屏障受损时减少异常微生物暴露,在特定菌株明确时进行选择性靶向,在组织已经变硬时针对机械和基质重塑。
但组合治疗也意味着更复杂的风险管理。每增加一种干预,就需要回答它是否真的必要、是否会与现有药物相互影响、如何监测效果、何时停止。患者真正需要的不是“越多越先进”,而是有明确目标、有证据支持、能够被监测和调整的个体化方案。
克罗恩病肠道纤维化,并不是简单的“炎症留下的疤痕”,而更像一场长期失衡的修复:反复的炎症、受损的肠道屏障、被激活的免疫细胞、不断沉积的细胞外基质,以及肠系膜脂肪和肠道微生物群的变化,共同推动肠壁逐渐增厚、变硬,最终形成狭窄。
这种复杂性可能令患者感到疲惫:症状反复,检查结果未必完全反映实际感受,治疗也难以立即解决所有问题。但复杂不等于无能为力。研究正从“炎症如何发生”进一步转向“组织为何硬化”“哪些微生物信号参与其中”以及“如何在维持正常生态的基础上进行干预”。这些更精准的问题,将推动治疗更贴近患者需求。
肠道微生物群让我们看到,纤维化的发生不只取决于“有没有炎症”,还与肠道如何识别微生物信号、屏障是否完整、哪些代谢物增加或减少密切相关。菌群失调可能通过激活成纤维细胞、放大TGF-β等促纤维化信号、影响免疫反应和“爬行脂肪”,使修复过程难以适时停止;而短链脂肪酸等有益代谢物及其产生菌,可能有助于维持屏障和免疫平衡。
未来更合理的路径,是以规范控制炎症为基础,结合症状、实验室指标、影像与内镜评估、营养管理和生活方式调整,并在合适情况下纳入肠道菌群等微生态监测信息,开展个体化、动态化的综合干预。理解并利用微生物组,不是寻找“万能答案”,而是让我们有机会更早识别风险、更精准地保护肠道,并尽可能阻止肠壁在反复损伤与修复中逐渐变硬。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
相关阅读:
真实案例 | 克罗恩病患者肠道菌群检测
肠道菌群:用于区分克罗恩病与非克罗恩回肠炎
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
肠道菌群失调与炎症性肠病的关联
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症性肠病中宿主与微生物群的相互作用
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
什么是肠道屏障,影响因素,监测评估以及如何治疗干预
主要参考文献
Kim JH, Choi YJ, Yoo JH. Gut microbiome: a key driver and therapeutic target of intestinal fibrosis in Crohn’s disease. Intest Res. 2026 Aug 10.
Rieder F, Mukherjee PK, Massey WJ, Wang Y, Fiocchi C. Fibrosis in IBD: from pathogenesis to therapeutic targets. Gut. 2024 Apr 5;73(5):854-866.
Fousekis FS, Mpakogiannis K, Mastorogianni IN, Lianos GD, Christodoulou DK, Katsanos KH. Intestinal Fibrosis in Crohn’s Disease: Pathophysiology, Diagnosis, and New Therapeutic Targets. J Clin Med. 2025 Jun 8;14(12):4060.
Rieder F, Fiocchi C, Rogler G. Mechanisms, Management, and Treatment of Fibrosis in Patients With Inflammatory Bowel Diseases. Gastroenterology. 2017 Feb;152(2):340-350.e6.
Lin X, Wang Y, Liu Z, Lin S, Tan J, He J, Hu F, Wu X, Ghosh S, Chen M, Liu F, Mao R. Intestinal strictures in Crohn’s disease: a 2021 update. Ther Adv Gastroenterol. 2022 Jun 21;15:17562848221104951.
Watanabe D, Kamada N. Contribution of the Gut Microbiota to Intestinal Fibrosis in Crohn’s Disease. Front Med (Lausanne). 2022 Feb 7;9:826240.
Kim HY, Song MK, Gho YS, Kim HH, Choi BK. Extracellular vesicles derived from the periodontal pathogen Filifactor alocis induce systemic bone loss through Toll-like receptor 2. J Extracell Vesicles. 2021 Oct;10(12):e12157.
Yoo JH, Holubar S, Rieder F. Fibrostenotic strictures in Crohn’s disease. Intest Res. 2020 Oct;18(4):379-401.
谷禾健康
“保温杯里泡枸杞”几乎成了当代养生文化的代名词。无论是写字楼里加班到深夜的年轻人,还是公园里晨练的中老年人,枸杞都以一种近乎”万能保健品”的姿态出现在日常饮食中。人们相信它能明目、护肝、抗衰老、增强免疫力,甚至把它当作熬夜后的”补救良药”。然而,当我们把一捧干红枸杞丢进热水时,真正被我们喝进身体的“有效成分”究竟有多少?这些成分又是怎样在体内发挥作用的?答案远比想象中复杂。
枸杞(goji berry)是茄科植物,在中国已有约2300年的药用与食用历史,被《神农本草经》列为上品,是典型的”药食同源”物种。现代研究表明,枸杞果实中含有多糖、黄酮、生物碱、类胡萝卜素、甜菜碱、维生素C类似物(2-O-β-D-吡喃糖基-L-抗坏血酸)等多种活性成分。其中,枸杞多糖(Lycium barbarum polysaccharides,LBPs)占干果重量的5%–8%,被认为是枸杞最主要的活性物质,具有免疫调节、抗炎、抗肿瘤、抗氧化、降血糖、降血脂、神经保护、视网膜保护等多种药理活性。
但一个常被忽视的关键是:枸杞多糖本质上是水溶性大分子碳水化合物,结构上包括阿拉伯半乳聚糖、果胶、葡聚糖、木聚糖等多种类型。这类大分子多糖几乎不能被人体自身的消化酶分解——它们会”完整地”穿过胃和小肠,最终抵达大肠,在那里被数以万亿计的肠道微生物所发酵、利用。换言之,你喝下去的枸杞多糖,真正决定其健康效应的,不是你的胃,而是你肠道里的“微生物工厂”。
这一发现彻底改变了人们对枸杞多糖作用机制的理解。近年研究证实,枸杞多糖的诸多健康益处——从调节免疫、改善肥胖与糖尿病,到缓解结肠炎——都依赖于肠道菌群的中介:多糖被菌群发酵后产生短链脂肪酸(SCFAs)等代谢物,这些代谢物才是真正作用于宿主免疫与代谢的”信使”。这意味着,同样吃枸杞,肠道菌群不同的人,获得的效果可能天差地别。
本文将系统梳理三个核心问题:第一,当前人们补充枸杞多糖存在哪些问题与不足?第二,枸杞多糖与肠道微生物群之间存在怎样的双向相互作用?第三,如何“借菌发力”,利用肠道微生物群让枸杞多糖的补充更科学、更高效。
近年来,随着“药食同源”、肠道健康和功能食品理念持续升温,枸杞多糖正从传统枸杞中的“幕后活性成分”走向大众消费市场。作为枸杞中最受关注的生物活性成分之一,它不仅频繁出现在枸杞原浆、养生茶饮、固体饮料、乳制品、营养代餐和保健食品中,也被开发为胶囊、口服液及功能性配方原料。
人们对其抗氧化、免疫调节、肠道菌群调节及代谢健康等潜在作用的关注不断增加,使枸杞多糖成为连接传统养生文化与现代营养科学的一类热门天然成分。
枸杞多糖到底是什么?
枸杞多糖不是一种单独、固定的“神奇成分”,而是一大类从枸杞果实中提取出的、由许多糖分子连成的复杂大分子,英文常写作(LBPs/Lycium barbarum polysaccharides)。
从化学结构上看,它是以阿拉伯糖、半乳糖、葡萄糖、鼠李糖、甘露糖、木糖等拼成的复杂多糖,常还带有少量蛋白质。它更像枸杞中一组结构各异的“功能性膳食纤维—糖蛋白复合物”,是当前枸杞研究最受关注的成分之一。
doi: 10.2147/DDDT.S72892.
(A)枸杞的果实;(B)棕色的枸杞多糖;(C)以及枸杞多糖中存在的六种主要单糖
↘ 枸杞多糖的一些特点
枸杞多糖具有哪些生物活性?其中哪些作用对人体健康更有实际意义?现有研究提示,它可能参与免疫调节、抗氧化、肠道与代谢健康、眼部保护、神经保护及放化疗辅助等多个过程。不过,不同作用的证据基础差异很大,以下将依据现有科学证据的强弱逐一说明。
免疫调节:研究最多、证据最充分
免疫调节是枸杞多糖(LBPs)研究最集中、证据也相对较充分的领域。
↘ 枸杞多糖影响免疫细胞,改善抗体反应
细胞和动物研究显示,LBP可影响T细胞、B细胞、自然杀伤(NK)细胞、巨噬细胞及树突状细胞等多种免疫细胞,促进IL-2、IFN-γ等免疫相关因子的表达,并可能改善抗体应答。部分动物研究还发现,LBP可促进滤泡辅助性T细胞及生发中心B细胞反应,提示其可能参与适应性免疫调控。
其机制可能涉及TLR2/TLR4、NF-κB和Notch等信号通路;此外,LBP还可能经肠道菌群发酵产生短链脂肪酸,影响肠道相关淋巴组织和肝脏免疫细胞,形成“肠—肝—免疫”调节链条。
枸杞多糖可能具有的免疫调节作用机制
doi: 10.2147/DDDT.S72892.
↘ 人体补充枸杞汁后免疫分子水平升高
人体证据方面,早期小型研究使用枸杞汁制剂,剂量约为每日120 mL、相当于LBP约1.63 g,连续补充2至4周后,受试者的主观精力、睡眠、胃肠规律性和幸福感有所改善;部分研究还观察到淋巴细胞、IL-2和IgG水平升高。
枸杞多糖在宿主中的双重免疫调节作用
编辑
doi: 10.3390/foods11203177.
另有一项较早的晚期肿瘤辅助治疗研究显示,LBP联合LAK/IL-2可能提高客观缓解率和NK/LAK细胞活性,但这类结果仍需现代、高质量临床试验验证。
总体而言,枸杞多糖在维持免疫平衡方面具有一定潜力,但尚不能据此将其视为“增强免疫力”的药物。
抗氧化:有作用,但并非万能药
↘ 能够提高多种抗氧化酶活性
枸杞多糖可提高超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPx)和过氧化氢酶(CAT)等内源性抗氧化酶活性,并降低丙二醛(MDA)等脂质过氧化指标。
健康中老年人的小型人体研究中,连续补充枸杞汁后,SOD和GPx有所升高,MDA有所下降,提示其可能具有一定抗氧化效应。
↘ 激活抗氧化防御通路
研究还指出,不同分子量的LBP功能并不完全相同,部分低分子量组分可能具有更强的抗氧化活性。在细胞和动物模型中,LBP可通过激活Nrf2/HO-1、NQO1等抗氧化防御通路,减轻氧化应激对视网膜色素上皮细胞等组织的损伤。
枸杞多糖的抗氧化活性及其作用机制
但“抗氧化”并不意味着可以无限制清除自由基,更不能据此推断其具有明确的抗衰老或治病作用。目前人体证据主要是短期生物标志物变化,长期健康结局仍缺乏充分验证。
抗炎作用:降低促炎细胞因子的水平
枸杞多糖作为枸杞的主要有效成分之一,具有良好的抗炎作用。
↘ 枸杞多糖调节TNF-α、IL-6等水平
核因子κB 是关键的转录因子,能够调节炎症反应。研究表明,枸杞多糖可以通过抑制 NF-κB 及其核转移,从而降低促炎细胞因子的水平,如肿瘤坏死因子α(TNF-α)、白细胞介素-6(IL-6)等。
实验研究进一步证实了枸杞多糖的抗炎效果,枸杞多糖可能通过相关信号通路调控STAT1、STAT6介导的巨噬细胞极化,从而减轻结肠炎小鼠的体重下降、结肠缩短和疾病活动指数异常等表现。
因此,未来可以进一步研究枸杞多糖的抗炎机制,并深入探索其重要的作用途径,以充分发挥枸杞多糖的多种抗炎效果。
代谢与肝脏健康:人体数据有限
↘ 改善胰岛素敏感性,调节血糖水平
动物研究表明,枸杞多糖(LBPs)可能通过促进GLUT4转位、激活AMPK通路和抑制肝糖异生,改善胰岛素敏感性和糖代谢。
在针对 2 型糖尿病患者的临床试验中,研究人员观察到:在连续三个月服用枸杞多糖后,患者的血清葡萄糖水平显著下降,而胰岛素分泌指数和高密度脂蛋白水平则有所上升。这表明枸杞多糖可能是治疗 2 型糖尿病的潜在有效辅助药物。
枸杞多糖对糖尿病患者血糖稳态的影响
编辑
doi: 10.3389/fnut.2022.916271.
↘ 枸杞多糖护肝作用及改善肝脏损伤
枸杞多糖具有肝脏保护作用。研究表明,它可降低丙氨酸氨基转移酶水平、提高肠道微生物丰富度,并减轻乙醇诱导的肝损伤。研究进一步表明,分子量约为5—10 kDa的枸杞多糖具有较强的乙醇性肝损伤保护作用,未来可进一步比较不同分子量组分的功效差异。
可能具有保护肝脏作用的枸杞多糖
编辑
doi: 10.2147/DDDT.S72892.
此外,长期暴露于邻苯二甲酸二(2-乙基己基)酯可能导致肝脏解毒酶异常和肝功能障碍。研究显示,枸杞多糖可抑制肝脏孕烯X受体及其下游Ⅰ相、Ⅱ相解毒酶的表达,从而改善相关肝脏损伤。
注:在四氯化碳诱导的急性肝损伤模型中,20 mg/kg枸杞多糖可减轻线粒体损伤,改善脂质代谢,并缓解肝脏结构损伤和过度纤维化。
↘ 还可能有助于改善肥胖、血脂异常等
部分研究还提示,它可降低总胆固醇、甘油三酯和低密度脂蛋白胆固醇,并提高高密度脂蛋白胆固醇水平。
枸杞多糖和益生菌对代谢综合征的改善效果
编辑
doi: 10.3390/foods11203177.
不过,目前与糖尿病、肥胖、血脂异常和非酒精性脂肪肝相关的主要证据仍来自动物实验。尽管已有小样本2型糖尿病临床研究提示辅助降糖潜力,但尚不足以支持其替代规范治疗,更不能作为降糖、降脂或减肥产品的依据。
改善肠道屏障与消化系统
↘ 枸杞多糖有助于肠道健康
枸杞多糖(LBP)本身难以被人体直接完整吸收,其部分作用可能与肠道菌群利用和代谢有关。在动物模型中,LBP可维持ZO-1、occludin和claudin等肠道紧密连接蛋白的表达,抑制NF-κB和MLCK相关异常信号,从而减轻肠上皮屏障损伤。它在DSS诱导性结肠炎模型中也显示出一定保护作用。
可能的意义包括:
这些发现为枸杞多糖支持肠道健康提供了合理的生物学解释,对于普通人而言,更适合将其理解为可能有助于维持肠道微生态和屏障功能的膳食成分。本文将在后续内容中进一步阐述,肠道微生物群如何有助于机体更充分、更有效地利用枸杞多糖。
抗肿瘤活性:有潜力,但避免夸大
↘ 枸杞多糖能够促进肿瘤细胞凋亡、辅助抗肿瘤
在细胞和动物实验中,枸杞多糖(LBP)可影响肿瘤细胞周期、促进凋亡,并调节Bax、Bak、Bcl-2及caspase-3/9等相关信号。部分研究还观察到其可能改变乳腺癌细胞的雌激素代谢,或提高某些肿瘤细胞对放疗、化疗的敏感性。
在放化疗相关研究中,LBP在动物模型中曾显示出减轻多柔比星心脏毒性、骨髓抑制和放射损伤的潜力,且部分结果提示其未削弱抗肿瘤药物的杀伤作用。早期临床研究也曾观察到LBP联合LAK/IL-2用于晚期肿瘤时的辅助获益。
枸杞多糖具有抗癌活性的可能机制
编辑
doi: 10.2147/DDDT.S72892.
↘ 不同枸杞多糖对肿瘤细胞的作用存在差异
值得注意的是,枸杞多糖不是单一、固定的化合物,而是一组结构和分子量各异的多糖组分。不同组分甚至可能产生相反结果:某些低分子量组分表现出抑制肿瘤细胞增殖的作用,而另一些高分子量组分则可能促进增殖。因此,不能将“枸杞多糖”笼统等同于抗癌成分。LBP不能用于替代肿瘤规范治疗;肿瘤患者若考虑补充,也应先与主治医生沟通。
眼健康:已有初步人体研究
眼部健康是近年来较受关注的方向。枸杞含有玉米黄质等类胡萝卜素,而LBP可能与这些成分协同,通过Nrf2/HO-1等通路减轻蓝光和氧化应激对视网膜细胞的损伤。
注:玉米黄素(Zeaxanthin),是叶黄素类脂溶性色素成分,为β-胡萝卜素的二羟基衍生物。
↘ 提高黄斑色素光密度,改善视觉对比敏感度
一项人体研究提示,补充枸杞相关制剂可能提高黄斑色素光密度,并改善视觉对比敏感度。这为其潜在眼部益处提供了初步临床线索。动物研究还显示,LBP可能减轻视网膜神经节细胞缺血再灌注损伤。
但这并不意味着食用枸杞或补充LBP可以治疗黄斑变性、青光眼或其他眼病。现有研究的样本量和持续时间均有限,眼病患者仍应以眼科规范诊疗为主。
其他健康益处
↘ 神经保护效应
在认知障碍和衰老动物模型中,枸杞多糖(LBP)可能改善空间记忆,并涉及BDNF/TrkB、PI3K-Akt和Nrf2等信号通路。它也可能通过调节小胶质细胞极化、降低TNF-α和IL-1β等炎症因子,减轻神经炎症。
枸杞多糖对脑损伤具有神经保护作用
编辑
doi: 10.2147/DDDT.S72892.
↘ 心血管保护
心血管方面,动物实验提示枸杞多糖可能经NO-cGMP通路促进血管舒张,并可能减轻氧化低密度脂蛋白相关损伤、血管平滑肌细胞增殖和内皮功能异常。
枸杞多糖具有心脏保护作用的机制
编辑
doi: 10.2147/DDDT.S72892.
↘ 生殖保护
此外,枸杞多糖在多种生殖损伤动物模型中表现出一定保护作用,例如减轻热应激、氧化应激、辐射或环境化学物导致的睾丸损伤,并可能影响精子线粒体功能和卵巢相关指标。
枸杞多糖对双酚A引起的精子损伤具有保护作用
编辑
doi: 10.2147/DDDT.S72892.
不过,这些领域目前主要是机制探索和动物实验结果,缺乏可靠人体证据,不能直接推断为改善认知、保护心血管或提高生殖功能的效果。
随着枸杞多糖功能研究的不断深入,其应用已由传统食用方式逐步拓展至功能食品、营养补充剂及医药辅助研究等多个领域。
然而,不同应用形式在成分组成、有效剂量、质量控制和科学证据水平方面仍存在差异。了解枸杞多糖当前的主要使用方式,并进一步探讨如何实现其更科学、安全和高效的利用。
1
日常食品:最普遍、最成熟
这是它目前最常见的应用场景,包括:
需要注意:吃枸杞不等于只摄入枸杞多糖。 枸杞还含有玉米黄质、类胡萝卜素、黄酮、甜味糖、有机酸等。因此,完整枸杞食品的效果通常是多种成分共同作用,不能把所有益处都归功于多糖。
2
保健食品与营养补充剂:越来越常见
市场上常见“枸杞多糖提取物”“枸杞多糖胶囊”“枸杞多糖口服液”等。这类产品的优势是剂量集中、携带方便;但问题也很突出:
3
医药与临床:仍处于“研究阶段”
枸杞多糖在抗肿瘤辅助、糖尿病辅助管理、脂肪肝、神经保护、眼部保护、药物递送材料等方面都有研究,但总体仍不能把它视为成熟的标准治疗药物。
最准确的定位是:枸杞多糖已经是有较多基础研究支持的功能食品成分;在临床治疗层面,仍属于证据持续积累、标准化不足的研究方向。
当前人们补充枸杞多糖存在的不足
⑴ “吃枸杞”不等于“定量补充枸杞多糖”
日常生活中,人们主要通过干枸杞、原浆、茶饮、酸奶和枸杞粉等摄入枸杞。由于完整枸杞还含有类胡萝卜素、黄酮、有机酸和糖类等成分,其作用通常是多种物质共同作用的结果,不能完全归因于枸杞多糖。不同产品的用量、加工方式和多糖保留率也各不相同,不能仅凭产品名称比较其效果。
泡水只能提取部分水溶性多糖,若只喝水而不食用果实,实际摄入量可能较低。原浆和粉剂虽能保留更多成分,但部分产品含有添加糖。对于需要控制血糖或能量摄入的人,糖含量往往比产品是否含有枸杞多糖更值得关注。
⑵ “总多糖”不能代表明确的活性成分
枸杞多糖并非一种固定物质。其分子量、单糖比例、糖苷键、支链数量及是否结合蛋白质,均可能影响其发酵特征和生物活性。研究报道的枸杞多糖分子量跨度很大,不同产地、品种、成熟度、提取温度及纯化方法都可能改变最终组成。
市场产品常用比色法测定“总多糖”,但这一数值主要说明样品中可被该方法检测的糖类总量,并不能回答以下问题:其中有多少是结构明确的枸杞多糖?是否混有单糖、低聚糖或其他杂质?分子量和支化程度是否稳定?不同批次能否产生相同的菌群效应?因此,两个均标注“多糖含量30%”的产品,其结构和实际作用可能并不相同。
⑶ 提取和加工过程可能改变结构
热水、超声、酶解等提取纯化方法虽能提高多糖得率或纯度,也可能改变其分子量、支化和聚集状态,因此高得率、高纯度并不等于高活性。精制多糖也不能与市售粗提物直接等同。
2024年的研究发现,LBP1、LBP2和LBP3对肠道菌群及短链脂肪酸的影响各异:富含阿拉伯糖和半乳糖的LBP3更能促进乙酸和丙酸生成,LBP1和LBP2则与丁酸生成相关。可见,枸杞多糖并非越多越好,其结构及相应的发酵效应更为关键。
⑷ 动物实验剂量不能简单换算为人类补充剂量
现有证据主要来自体外和动物实验,各研究的剂量、周期、动物品系及疾病模型差异较大。由于人和动物在代谢、肠道结构与菌群组成上存在差异,动物剂量不能直接用于人体。
⑸ 个体菌群差异可能造成“同样补充,不同反应”
肠道菌群受饮食、年龄、遗传、疾病、药物及生活方式影响。枸杞多糖需依靠微生物酶降解:缺少关键菌时,其发酵和利用受限;拥有完整的“降解—交叉喂养—产酸”菌群网络时,则可生成更多有益代谢物。
因此,菌群不仅影响枸杞多糖能否被利用,也决定乙酸、丙酸和丁酸等产物的比例,这可能解释不同研究结果不一致甚至相反的现象。
许多人以为枸杞多糖能直接被肠道完整吸收进入血液,但实际上并非如此。由于难以被人体消化酶直接分解,枸杞多糖进入结肠后会被特定菌群发酵利用,调节菌群组成并促进短链脂肪酸等代谢物生成;同时,个体菌群的结构与代谢能力又决定其降解效率和生物效应。因此,肠道微生物群是连接枸杞多糖摄入与健康作用的重要纽带。
肠道微生物对枸杞多糖的降解作用
枸杞多糖(LBPs)会被微生物特有的碳水化合物活性酶(如 GHs 和 PLs)水解,而这种活性酶通常在人类基因组中是不存在的。
注:糖苷水解酶(GH)和多糖裂解酶(PL)
↘ 枸杞多糖大部分需要靠微生物中的酶来进行分解、转化
研究发现,枸杞多糖跨越肠上皮细胞层的比例很低,这意味着其作用重点可能并非“完整吸收入血”,而是肠腔内的局部作用和微生物转化。
可以将这一过程理解为:人摄入的是“原料”,肠道微生物负责进一步加工。只有携带相应酶系统的细菌才能切开多糖主链或支链,释放较小糖片段;这些片段随后还可被其他细菌继续利用,形成交叉喂养网络。
枸杞多糖对不同肠道微生物的影响
↘ 枸杞多糖抑制致病菌与肠道炎症
变形菌门中包含志贺氏菌、沙门氏菌、大肠杆菌、幽门螺杆菌和铜绿假单胞菌等多种潜在病原体。变形菌门,尤其是革兰氏阴性菌的异常增殖,是肠道菌群失调的典型特征。
与革兰氏阳性菌相比,革兰氏阴性菌可诱导人源细胞产生更多促炎因子IL-6和IL-8。其中,脂多糖(LPS)可被TLR4等模式识别受体识别,并通过MAPK/NF-κB通路促进TNF-α等炎症因子释放,进而加剧肠道炎症和稳态失衡。
研究显示,阿拉伯糖半乳糖型LBP-3可显著减少结肠炎小鼠体内的变形菌,尤其是具有促炎特性的肠杆菌科细菌;葡聚糖型LBP则能抑制TLR4-MAPK/NF-κB通路,降低IL-1β和TNF-α水平。此外,该类型LBP还可减少高脂饮食诱导的NAFLD小鼠体内变形菌数量及LPS/TLR4/NF-κB通路活性。补充阿拉伯半乳聚糖型LBP-W后,异常升高的变形菌相对丰度也可显著下降并恢复至正常水平。
↘ 枸杞多糖促进益生菌增殖与稳态
体外研究显示,12–20 mg/mL的枸杞多糖(LBPs)可显著促进多种双歧杆菌和乳杆菌生长。
同样,由葡萄糖、麦芽糖和鼠李糖组成的LBPs,也能显著促进双歧杆菌、婴儿双歧杆菌、长形双歧杆菌、动物双歧杆菌、嗜酸乳杆菌和植物乳杆菌在体外的生长。
其中,嗜酸乳杆菌和长双歧杆菌在MRS培养基中的最大浓度分别达到8.23 ± 0.30和6.34 ± 0.11 log₁₀ CFU/mL。在正常小鼠中补充LBP可提高乳酸杆菌相对丰度和结肠sIgA水平,从而增强先天免疫。
此外,每日补充50 mg/kg体重、分两次给予的阿拉伯半乳聚糖型LBP-W,不仅提高了肠道菌群多样性,还增加了正常及高胰岛素饮食诱导肥胖小鼠体内乳杆菌的丰度。
↘ 枸杞多糖富集多糖利用菌并重塑菌群结构
除病原菌和益生菌外,LBPs还可富集含多种糖苷水解酶(GH)和多糖裂解酶(PL)的多糖利用菌。体外人肠道菌群研究表明,阿拉伯半乳聚糖型和果胶型LBPs均能促进拟杆菌属增殖;不同LBPs也可增加正常饮食小鼠和C57BL/6J小鼠中“第二代益生菌”Akkermansia的丰度。此外,LBPs可提高正常小鼠和结肠炎小鼠中产次级胆汁酸的瘤胃球菌科细菌丰度。
然而,枸杞多糖对短链脂肪酸产生菌的影响存在差异。在环磷酰胺诱导的免疫抑制小鼠中,阿拉伯半乳聚糖型LBPs可增加拟杆菌属、Lachnospiraceae和Ruminococcaceae的丰度;阿拉伯半乳聚糖—果胶复合物WBPPS则在富集拟杆菌属和Ruminococcaceae的同时,降低Rikenellaceae、Marinifilaceae和Alistipes的丰度。
此外,未经化学表征的枸杞多糖可改变标准饮食小鼠中Akkermansia muciniphila、Allobaculum stercoricanis、Citrobacter、Tannerella、Spirochaeta和Parasutterella excrementihominis等菌的丰度,提示其作用受枸杞多糖类型及动物模型影响。
总体而言,枸杞多糖对宿主健康的益处可能源于其能够丰富益生菌、减少病原体数量,并稳定共生细菌的数量,从而调节微生物结构。
枸杞多糖调节肠道微生物产生的代谢物
肠道微生物产生的小分子代谢物是连接菌群与宿主的重要媒介,可调节肠道及全身免疫。由于肠道菌群高度复杂,其整体代谢状态难以用单一菌种的代谢活动解释。短链脂肪酸、次级胆汁酸和色氨酸代谢物是三类主要微生物代谢物,对维持肠上皮完整性和屏障功能至关重要。
枸杞多糖对肠道微生物群和肠道屏障的调控
编辑
doi: 10.3390/foods11203177.
↘ 枸杞多糖提高短链脂肪酸水平进而减轻炎症
短链脂肪酸是枸杞多糖(LBP)发酵的主要终产物,可通过多种途径调节宿主生理功能:
1.降低肠道局部pH、促进黏蛋白分泌,并抑制病原体生长与黏附;
2.抑制组蛋白去乙酰化酶(HDACs),调控炎症和免疫相关基因表达,减少TNF-α等促炎因子分泌;
3.激活上皮细胞或免疫细胞表面的G蛋白偶联受体GPR41、GPR43和GPR109A,诱导免疫反应;
4.为肠上皮细胞提供能量,促进其分化和增殖,改善屏障功能;
5.抑制NF-κB信号通路并减轻氧化应激,从而降低结肠炎症及癌变风险。
研究表明,枸杞多糖不仅能提高短链脂肪酸水平,还可促进相关产酸菌生长,如产乙酸的双歧杆菌、普雷沃拉菌和拟杆菌,产丙酸的双歧杆菌、粪球菌和瘤胃球菌,以及产丁酸的粪球菌和粪杆菌属。
↘ 枸杞多糖调控氨基酸及有机酸代谢
研究还发现,阿拉伯半乳聚糖型LBPs可逆转多种氨基酸和有机酸代谢异常,涉及色氨酸、苯丙氨酸、赖氨酸、谷氨酰胺、高丝氨酸和亮氨酸,以及酮脲素、尿黑素原、2-异丙基甲酸、抗坏血酸、葡萄糖酸、(S)-2-羟基谷氨酸和牛磺酸等。
通路分析显示,LBP-3还可调节戊糖磷酸途径,苯丙氨酸、酪氨酸和色氨酸的生物合成,以及苯丙氨酸代谢。
↘ 枸杞多糖降低脂多糖水平并改善糖尿病代谢
脂多糖(LPS)也被视为肠道细菌来源的代谢产物。在高脂饮食(HFD)/链脲霉素诱导的糖尿病模型中,枸杞多糖(LBP)干预可显著降低大鼠和小鼠体内的LPS水平。
尿液代谢组学分析进一步表明,葡聚糖型LBP可提高糖尿病大鼠的肌酐、2,2,3-二羟基丁酸、D-半乳糖醛酸和柠檬酸水平,同时降低甲基丙酸、苯甲酸和木糖醇水平,使其趋于正常。
↘ 枸杞调节炎症相关代谢物水平
此外,补充枸杞成分可降低亚油酸和花生四烯酸等ω-6多不饱和脂肪酸,以及L-缬氨酸、L-苯丙氨酸、L-丝氨酸、L-赖氨酸、L-甲硫氨酸和L-谷氨酸等炎症相关氨基酸的水平;这些氨基酸在白细胞介素-10缺乏小鼠的粪便中与肠道炎症密切相关。
编者小结
枸杞多糖与肠道菌群的关系并非简单的“促进益生菌”,而是一个由多糖结构、微生物酶系及菌群协作共同决定的生态过程。不同结构的枸杞多糖会选择性富集具有相应降解能力的细菌,其分解产物又可通过交叉喂养被其他菌群利用,最终形成短链脂肪酸等活性代谢物。
因此,枸杞多糖的健康效应可能取决于个体原有菌群是否具备完整的“降解—传递—发酵”网络。这也提示,同一种枸杞多糖在不同个体中可能产生不同效果。未来应从单纯观察菌群丰度变化,转向解析多糖结构、功能菌群与代谢产物之间的因果联系,从而为枸杞多糖的精准营养应用提供依据。
枸杞多糖的健康效应在很大程度上依赖肠道菌群的参与,因此,补充枸杞多糖的同时,也应注重养护肠道菌群,使“补多糖”与“养菌群”协同进行。
本章将围绕原料选择、菌群协同、膳食搭配、剂量与节奏、补充时机及人群适配等层面,提出一套“借菌发力”的实践策略,帮助枸杞多糖更好地被肠道菌群利用,力求使其真正抵达结肠并充分发酵,从而切实“发挥出价值”。
1
选对”多糖形态”
——从结构入手提高菌群利用率
↘ 优先选择具有阿拉伯半乳聚糖结构的枸杞多糖
枸杞多糖是结构异质的混合物,不同结构对菌群的“喂养效率”不同。研究发现,阿拉伯半乳聚糖型枸杞多糖对双歧杆菌与乳酸杆菌的促生长效果最为突出,因为其富含的阿拉伯糖、半乳糖及阿拉伯寡糖、半乳寡糖片段,恰好是这些益生菌偏好的底物。因此,优先选择保留阿拉伯半乳聚糖结构的产品,是提高菌群利用率的第一步。
↘ 温和的工艺使分子结构保留比高浓度更易吸收
在提取工艺上,超声辅助提取兼具高效率、短时间、低溶剂消耗的优势,且能通过降低分子量、打断氢键来增强多糖的生物活性。分子量适中的多糖片段更易被菌群的碳水化合物活性酶(CAZymes,如糖苷水解酶GH、多糖裂解酶PL)切割利用。
相比之下,传统长时间高温水提虽简单,却可能破坏多糖分支结构、降低益生元活性。对消费者而言,这意味着:与其追求”高浓度原浆”,不如关注”温和工艺、结构保留、分子量适中“——后者才是菌群”吃得动”的形态。
2
益生元+益生菌”协同
枸杞多糖本质是益生元,其发挥作用的前提是肠道内有相应的益生菌来发酵它。枸杞多糖能促进嗜酸乳杆菌与长双歧杆菌增殖,并在小鼠体内提升脾脏与胸腺指数、增加结肠sIgA。这意味着,枸杞多糖与益生菌像是”原料与工人”的关系,缺一不可。
↘ 摄入枸杞多糖的同时补充乳杆菌、阿克曼菌等
实践中可采用合生元策略,在补充枸杞多糖的同时,摄入富含双歧杆菌、乳杆菌的食物或制剂(如无糖酸奶、发酵乳、益生菌补充剂),或日常多吃富含天然益生菌的发酵食品。
研究还指出,阿克曼菌(Akkermansia muciniphila)作为”第二代益生菌”新秀,可被枸杞多糖富集,与肠道屏障完整性和代谢健康密切相关。一个”先养菌、再喂多糖”的顺序也值得考虑:先用1–2周调整菌群(增加益生菌与膳食纤维摄入),再系统补充枸杞多糖,发酵效率更高。
3
改善菌群的整体生态
——用高纤维饮食为降解菌”扩充”
枸杞多糖的发酵效果深受整体膳食结构影响。高脂高糖饮食会抑制多糖降解菌,促进变形菌等促炎菌增殖;富含膳食纤维的饮食则有助于维持拟杆菌、双歧杆菌、瘤胃球菌和粪杆菌等糖类利用菌的丰度。这些菌富含GH和PL酶系,是发酵枸杞多糖的主要力量。
↘ 多样化饮食,尤其是富含纤维的食物
对普通健康人而言,最现实的办法是保持多样化、富含天然膳食纤维的饮食,包括全谷物、豆类、蔬菜、水果、菌菇和坚果。其目的不是保证某个菌属一定增加,而是为多糖降解菌和短链脂肪酸产生菌提供连续、丰富的底物,维持微生物之间的交叉喂养。
枸杞可作为这种饮食的一部分,而不应取代其他植物性食物。较为稳妥的生活化方式是将适量完整枸杞用于酸奶、燕麦、杂粮粥或其他正常膳食,同时注意总糖和总能量。这样既能摄入枸杞成分,也能为菌群提供更加多样的植物底物。
4
剂量与节奏:规律、渐进的摄入方式
↘ 枸杞多糖补充也并非一下子越多越好
体外实验表明,枸杞多糖对益生菌呈“钟形”剂量效应:5%浓度促生长效果最佳,增至15%后反而减弱,说明过量补充可能抑制益生菌,甚至被条件致病菌利用。
动物实验的有效剂量为50~400 mg/kg;换算至人体,日常摄入量宜控制在数百毫克至1~2克,而非越多越好。
↘ 枸杞多糖宜少量分次持续补充
在节奏上,”少食多餐”优于”一次大量”。肠道菌群适应新的可发酵多糖需要时间。分次摄入能让多糖更均匀地抵达不同肠段、被不同菌群接力发酵,避免一次性过载导致发酵不充分或产气不适。建议将枸杞多糖分散到早晚餐或加餐中,而非一次性冲泡大剂量。同时,持续补充优于短期突击:动物实验的有效周期多为4–12周,菌群的重塑与代谢物水平的稳定需要时间,指望”喝三天就见效”并不现实。
如果出现持续腹痛、明显腹泻、便血或体重异常下降,应停止自行尝试并就医,不能简单解释为“菌群正在调整”或“排毒”。
5
时机与搭配:让多糖”走对地方”
↘ 最好随餐摄入,尤其可搭配富含益生菌的食物
枸杞多糖不易被小肠消化酶分解,可完整到达结肠,因此空腹或餐后服用对其作用影响不大。不过,与食物同服可延缓胃排空,使多糖更均匀地进入肠道,并减轻胃部刺激。还可搭配苹果、菊芋、香蕉等富含果胶或菊粉的食物,形成“复合益生元”效应,为多种降解菌提供底物。
枸杞多糖也可与酸奶、泡菜、纳豆等发酵食品同食,形成“益生元+益生菌”的协同作用。其发酵产生的丁酸等短链脂肪酸可通过GPR41/GPR43受体调节免疫并强化肠道屏障。
6
个体化补充需要功能检测
真正的精准补充不应只是检测粪便中有没有双歧杆菌或阿克曼菌,而应评估菌群是否具有利用目标多糖的功能。未来可结合宏基因组分析、碳水化合物活性酶谱、体外粪菌发酵和短链脂肪酸检测,判断个体更适合哪一种结构的枸杞多糖。
例如,若体外发酵显示某人的菌群对阿拉伯半乳聚糖产生较多乙酸和丙酸,而对果胶型多糖产生更多丁酸,就可能据此选择不同组分。但这一模式目前主要属于研究和产品开发方向,尚未成为常规临床服务。
面向不同人群的个性化补充建议
枸杞多糖”借菌发力”的策略,落到具体人身上不能一刀切。不同年龄、生理状态与基础疾病的人群,肠道菌群基线与代谢需求差异显著,补充方案应因人而异。
一、健康成年人
对于普通人,较稳妥的原则是:把枸杞视为多样化膳食中的一种食物,而不是药物,重在膳食协同。
健康成人的菌群结构相对稳定,枸杞多糖的作用是”锦上添花”——放大已有的菌群代谢优势。建议每日多糖摄入控制在数百毫克至1克级别,分散于早晚餐或加餐;优先选择阿拉伯半乳聚糖型;与酸奶、发酵食品同食形成合生元;以全谷物、蔬果的高纤维膳食托底。
评估信号:排便规律、腹胀减轻、精力稳定。
二、中老年人群
以“养菌”为先,兼顾免疫与代谢。随着年龄增长,肠道菌群多样性和双歧杆菌等有益菌丰度下降,条件致病菌增多。中老年人可先用1~2周增加益生菌和膳食纤维,再从每日数百毫克枸杞多糖开始,持续观察8~12周。
研究显示,枸杞多糖可改善脾脏、胸腺指数及结肠sIgA等免疫指标。正在服用降糖药或降压药者,应注意潜在相互作用,并在补充前咨询医师。
三、代谢综合征/肥胖人群
以”调菌”为核心,配合生活方式。代谢综合征患者常伴菌群失调(变形菌丰度增加、阿克曼菌减少、慢性低度炎症)。枸杞多糖可通过富集阿克曼菌、增加丁酸盐生成、调节GPR受体改善胰岛素抵抗与脂代谢。
建议在医生指导下,将枸杞多糖嵌入“低升糖+高纤维+规律运动”的综合方案,每日1–2克、持续12周以上,以短链脂肪酸生成与代谢指标(血糖、血脂、腰围)为评估点。
需强调:枸杞多糖是辅助而非替代药物,不可擅自停药。
四、儿童与青少年
谨慎为宜,优先食补:儿童菌群处于发育期,对外源多糖的耐受与反应不同于成人。文献缺乏儿童专项研究,建议优先通过天然食物(枸杞果、杂粮、蔬果)补充,避免高剂量提取物。确需补充时,剂量减半、密切观察消化反应。
五、特殊人群
孕妇、哺乳期、免疫缺陷或正在使用免疫抑制剂者,因缺乏安全性证据,应在医师指导下决定是否补充。枸杞多糖虽属食药同源,但其免疫调节与菌群重塑效应在特殊生理/病理状态下需审慎评估。
总体而言,利用肠道微生物群提高枸杞多糖利用效率的核心,不是简单增加剂量,而是实现结构明确的多糖、具备相应降解能力的菌群、持续健康的饮食环境之间的匹配。现阶段最可行的是将枸杞纳入多样化饮食、避免过量和夸大功效;未来则需要通过标准化多糖、特定菌株合生元和高质量人体试验,逐步实现更精准的应用。
从一粒枸杞,到结肠深处菌群发酵产生的分子丁酸——枸杞多糖的健康之旅,远比想象中复杂得多。本文沿着”多糖—菌群—代谢物—宿主“这条主线,把其中的关键环节说清楚。
第一、枸杞多糖并非像维生素那样直接入血发挥作用,它的主要”舞台”在结肠:人体消化酶拿它没办法,绝大多数要靠肠道菌群的碳水化合物活性酶(GH、PL等)切割发酵,生成短链脂肪酸等代谢物,再经由GPR41/GPR43等受体调节免疫与代谢。这意味着,”吃了多少克”远不如“菌群发酵出了什么”重要。
第二、枸杞多糖本质是益生元,需要与益生菌(双歧杆菌、乳酸杆菌、阿克曼菌等)形成”原料—工人”的合生元关系;它的发酵效果又被整体膳食结构深刻影响——高纤维饮食、降解菌丰度充足,多糖才能发挥出价值。
第三、补充应因人而异:健康成人侧重增效,中老年人兼顾养菌与免疫,代谢综合征患者重在调节菌群,儿童优先食补,特殊人群需谨慎评估。剂量也并非越高越好,应采用少量分次的方式,根据效果再进行调整。
总之,枸杞多糖的作用取决于多糖结构、菌群状态、膳食基础、剂量及个体差异。它不能替代药物或均衡饮食,而可能通过优化菌群—代谢—免疫网络发挥辅助作用。理解枸杞与肠道菌群的双向互动,才能让“保温杯里泡枸杞”更具科学依据。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Cao C, Wang Z, Gong G, Huang W, Huang L, Song S, Zhu B. Effects of Lycium barbarum Polysaccharides on Immunity and Metabolic Syndrome Associated with the Modulation of Gut Microbiota: A Review. Foods. 2022 Oct 12;11(20):3177.
Wang, Q.; Tian, F.; Feng, Z.; Fan, X.; Pan, Z.; Zhou, J. Antioxidant Activity and Physicochemical Properties of Chitosan Films Incorporated with Lycium barbarum Fruit Extract for Active Food Packaging. Int. J. Food Sci. Technol. 2015, 50, 458–464.
Ma Q, Zhai R, Xie X, Chen T, Zhang Z, Liu H, Nie C, Yuan X, Tu A, Tian B, Zhang M, Chen Z, Li J. Hypoglycemic Effects of Lycium barbarum Polysaccharide in Type 2 Diabetes Mellitus Mice via Modulating Gut Microbiota. Front Nutr. 2022 Jun 30;9:916271.
Tian X, Liang T, Liu Y, Ding G, Zhang F, Ma Z. Extraction, Structural Characterization, and Biological Functions of Lycium Barbarum Polysaccharides: A Review. Biomolecules. 2019 Aug 21;9(9):389.
Cheng J, Zhou ZW, Sheng HP, He LJ, Fan XW, He ZX, Sun T, Zhang X, Zhao RJ, Gu L, Cao C, Zhou SF. An evidence-based update on the pharmacological activities and possible molecular targets of Lycium barbarum polysaccharides. Drug Des Devel Ther. 2014 Dec 17;9:33-78.
Sharifi-Rad, J.; Quetglas-Llabrés, M.M.; Sureda, A.; Mardones, L.; Villagran, M.; Sönmez Gürer, E.; Živković, J.; Ezzat, S.M.; Zayed, A.; Gümüşok, S.; et al. Supercharging Metabolic Health with Lycium barbarum L.: A Review of the Therapeutic Potential of This Functional Food for Managing Metabolic Syndrome. Food Front. 2024, 5, 420–434.
谷禾健康
在日常肠道菌群检测中,我们注意到一个值得讨论的现象:进入夏季以后,样本中沙门氏菌的检出有所增加。
看到报告上的沙门氏菌时,很多人的第一反应往往是:我是不是感染了?为什么没有腹泻、发热,也会检出?需要用药吗?…
沙门氏菌进入消化道后,可能只是短暂经过,也可能在肠道中停留;只有部分细菌能够进一步靠近并黏附肠上皮,启动侵袭过程或引起宿主免疫反应,这时才更接近感染。
而感染是否进一步发展为腹泻、腹痛、发热等症状,还受到细菌数量和菌株特征、肠道屏障、原有菌群状态以及个人免疫功能等多种因素影响。因此,同样是检出沙门氏菌,不同人的实际意义可能并不相同。
本文将带大家沿着沙门氏菌进入人体后的路径,了解它需要闯过哪些屏障,肠道菌群如何阻止它留下,它又怎样侵入上皮、利用炎症环境并躲避宿主防御。最后,我们再回到检测报告本身,讨论应该如何理解和应对沙门氏菌的检出。
什么是沙门氏菌?
沙门氏菌是一种杆状、革兰氏阴性、有鞭毛、兼性厌氧的细菌,属于肠杆菌目。沙门氏菌属包含 约 2600 多种血清型(这些血清型通过 Kauffman–White 分型方案进行鉴定)。
沙门氏菌的显微照片
编辑
来源:Sherris医学微生物学(第4版),麦格劳-希尔出版社(2003)
沙门氏菌并不是一种单一细菌,而是包含大量血清型的细菌类群。根据人类沙门氏菌病的临床表现,可以分为伤寒型沙门氏菌和非伤寒沙门氏菌。
沙门氏菌分类概述
编辑
doi.org/10.1080/1040841X.2026.2668055
注:几乎所有沙门氏菌都能够在其致病性和毒力武器的帮助下感染、繁殖和在人体宿主细胞中存活,这使其成为致命且重要的公共卫生病原体。
其中,肠炎沙门氏菌和鼠伤寒沙门氏菌是较常见的非伤寒沙门氏菌。非伤寒沙门氏菌是一种常见的肠道细菌感染,表现为腹泻、呕吐、腹痛以及其他临床体征 (WHO, 2018)。
鼠伤寒沙门氏菌血清型可以感染多种动物,例如牛、羊、山羊、猪、马等。
编辑
本文后文讨论的食物暴露、肠道菌群竞争、定植、侵袭和炎症机制,主要针对非伤寒沙门氏菌,尤其是鼠伤寒沙门氏菌和肠炎沙门氏菌。
编辑
<来源:谷禾肠道菌群检测数据库>
检出 = 感染 ?
在粪便样本中检出沙门氏菌,是否就代表已经感染?
答案是:不一定。
二者之间并不能直接画等号。
从接触沙门氏菌到真正发病,中间可能经历几个不同状态。
进入消化道,不一定能留下
沙门氏菌通常通过受到污染的食物、水、动物或环境进入人体。
但吃进去只代表发生了暴露。细菌到达胃肠道后,还可能被胃酸、胆汁、肠道运动和原有肠道菌群清除,最终随粪便排出。
因此,即使多人接触了同一批受到污染的食物,最后的检测结果和身体反应也可能不同。
编辑
检出可能只是短暂经过
一部分沙门氏菌可能只是随食物短暂通过消化道,没有在肠道中建立相对稳定的生存状态,就已经被排出。
如果采样时间恰好处于这个阶段,粪便检测可能得到阳性结果。此时的阳性更接近近期曾经接触过沙门氏菌,不一定说明细菌已经在肠道中持续存在。
能够留下,也不是说已经发病
如果沙门氏菌能够获得空间和营养,并在肠道中持续存在一段时间,就可能形成携带或定植状态。
携带或定植并不一定伴随腹泻、发热等症状。人体原有肠道菌群、肠道屏障和免疫系统,可能把沙门氏菌限制在较低水平,使其暂时没有造成明显健康影响。
编辑
感染和发病,区别在哪里?
当沙门氏菌开始黏附肠上皮、侵入细胞或激活明显免疫反应时,才更接近感染的含义。
研究表明,沙门氏菌经口进入人体,耐受胃内环境,到达小肠后黏附并侵袭肠上皮,随后可能在细胞内生存,少数情况下进一步向其他组织扩散。
感染并不一定立即产生明显症状。人体可能在早期就限制细菌扩增,因此只有轻微不适,甚至没有明显感觉。
当感染进一步引起腹泻、腹痛、恶心、呕吐或发热等临床表现时,才进入发病阶段。
沙门氏菌病由沙门氏菌引起,是全球最常见的食源性疾病之一,估计每年有9380万病例和约15.5万例死亡。
在工业化国家和发展中国家,沙门氏菌病都被报告为最常见的食源性人畜共患病之一,与急性、慢性肠炎和败血症等一系列疾病综合征相关。
这是一条可能的进展路径,但不是每个人都会依次经历全部阶段。多数沙门氏菌可能在前面的屏障中被清除,只有部分能够继续定植、侵袭并引起疾病。
沙门氏菌主要通过受污染的食物、水、动物或环境进入人体。禽肉、蛋类、肉制品、乳制品、果蔬和受污染水源,都可能成为传播环节;其中,食物储存不当、加热不足、厨房交叉污染,是较常见的风险来源。相关研究也把这些食品来源和处理环节列为沙门氏菌暴露的重要途径。
注:肠炎沙门氏菌是常见的非伤寒沙门氏菌血清型之一,主要与禽类、蛋类及相关食品链有关。但暴露也可能发生在禽肉加工、厨房交叉污染、设备和环境表面污染等环节。
编辑
也就是说,夏季更容易形成有利于沙门氏菌存活、增殖和传播的生活场景。
夏季首先改变的是温度条件
较高温度会加快许多细菌的生长,而冷藏只能抑制沙门氏菌增殖,不是完全杀灭它。即使食物经历冷冻,沙门氏菌在解冻并回到适宜条件后仍可能恢复生长。
有时候,时间、温度和交叉污染同时出现。例如:
这些场景会增加食物中沙门氏菌数量上升的机会,也可能让原本只发生在生食区的污染扩散到已经加工好的食物。
动物接触也是暴露途径之一
宠物犬等动物有时可以在没有明显症状的情况下携带沙门氏菌,并通过粪便、食盆、生活环境或生食传播细菌。
研究显示,宠物犬即使没有腹泻等明显临床症状,也可能作为沙门氏菌的无症状携带者。
伊拉克一项针对140只宠物犬的调查中,25只犬(17.9%)检出沙门氏菌。
这提示:宠物没有腹泻等明显症状,也有可能携带病原菌。
对家庭而言,值得注意的是“粪便或宠物食物—手和环境表面—厨房与即食食品”这条污染链。清理排泄物、处理宠物生食、清洗食盆之后,如果没有及时洗手或清洁接触面,细菌就可能被带入食品制备区域。
编辑
因此,应重点阻断排泄物清理、宠物食物处理、食盆及接触表面清洁与厨房食品制备之间的污染链。
夏季可能增加的是接触机会,但一次暴露能否继续发展,并不只取决于吃进去了多少沙门氏菌。细菌进入消化道后,还要连续面对胃酸、胆汁、肠道运动、黏液层、肠上皮等多重屏障。
这些屏障不断减少能够继续前进的细菌数量。
只有少部分细菌成功通过这些关口,才有机会在肠道中停留、定植并进一步引起感染。
胃酸:第一轮数量筛选
沙门氏菌随食物进入胃部后,首先面对的是低pH环境。
胃酸会破坏细菌的蛋白质、细胞膜和正常代谢,大量外来微生物会在这一阶段失去活性。因此,胃部可以看作一道重要的数量筛选屏障。
沙门氏菌具有一定的酸耐受能力,能够在酸性环境中启动应激反应,调整膜结构和相关基因表达。
注:耐受胃酸只代表细菌获得了继续前进的机会,并不等于它已经开始侵入肠上皮,也不意味着感染已经建立。
编辑
研究指出,胃内酸性环境会诱导沙门氏菌表达 SPI-1(Salmonella pathogenicity island-1)编码的III型分泌系统,促进其侵入回肠派尔集合淋巴结上皮中的 M 细胞,进入后续感染过程。
也就是说,这里胃酸完成了一轮筛选:大量细菌在这里失去活性,而少数具备适应能力的沙门氏菌不仅存活下来,还可能提前进入准备攻击的状态。
胆汁和消化环境:持续的膜与代谢压力
进入小肠后,沙门氏菌还要面对胆汁、消化酶、渗透压和营养条件的变化。
胆汁具有类似去污剂的作用,能够干扰细菌细胞膜。沙门氏菌虽然具备一定的胆汁耐受和应激调节能力,但仍需要消耗能量修复损伤并维持正常功能。
因此,食物中原本存在的沙门氏菌数量,不等于最终能够到达肠道深处的数量。细菌在经过胃和小肠上段的过程中,可能已经经历多轮削减。
肠道运动:不给外来细菌无限停留的机会
肠内容物始终在向前移动。
尚未黏附、没有找到适合生态位的沙门氏菌,可能随食物残渣和粪便被排出。肠道运动因此构成一种机械性清除机制。
这也说明,短暂检出并不一定意味着沙门氏菌已经在肠道中建立了稳定关系。细菌只有在被排出之前成功靠近黏膜、获得空间和营养,才可能进一步停留。
编辑
腹泻发生时,肠道运动和液体分泌增加,可能加快病原体排出;但与此同时,也会带来水分和电解质丢失,并影响原有菌群和屏障状态。因此,腹泻既是感染表现,也可能是人体试图限制病原体的一部分反应。
黏液层:隔开细菌与上皮细胞
肠道表面覆盖着黏液。黏液由杯状细胞分泌,能够减少细菌与上皮直接接触,同时把部分抗菌物质保留在黏膜附近。沙门氏菌要进一步侵袭,必须穿过或绕过这一层物理屏障。
黏液层会不断更新,并受到饮食、菌群和炎症状态影响。黏液结构完整时,外来细菌更难接近上皮;一旦屏障受损,沙门氏菌与上皮细胞接触的机会就可能增加。
肠上皮:最后一道局部结构防线
肠上皮细胞之间通过紧密连接相互连接,形成连续屏障,把大多数微生物限制在肠腔内。
与此同时,上皮细胞并不只是被动的墙。潘氏细胞和其他上皮细胞能够分泌抗菌肽等物质,直接限制靠近黏膜的细菌。
有研究表明,黏蛋白、REG3γ等黏膜防御成分有助于减少沙门氏菌接近和穿过上皮。
只有成功接近上皮、形成稳定黏附,并进一步启动侵袭程序,沙门氏菌才可能从肠腔中的外来细菌转变为参与感染过程的病原体。
即使沙门氏菌成功到达肠道,它仍然没有进入一个空白环境。肠道中原有的微生物已经占据空间、消耗营养并塑造局部代谢条件。下一章将进一步讨论:肠道菌群怎样形成定植抗性,使沙门氏菌即使到达肠道,也未必能够真正留下来。
外来细菌进入后,必须与这些已经适应肠道环境的微生物竞争。肠道菌群通过这种整体作用限制病原体定植,称为定植抗性。
可以概括为空间占据、营养竞争、抑菌物质、代谢环境调节以及对宿主黏膜屏障的支持。
1
先占据生态位置,让外来细菌难以立足
肠道中的黏液表面、食物颗粒和上皮附近,都已经存在相对稳定的微生物群落。
这些共生菌附着在适合自己的位置,并持续利用当地资源。沙门氏菌进入后,首先面临的问题不是怎样迅速大量繁殖,而是能否找到足够的空间停留下来。
因此,定植抗性是一个成熟生态系统已经把大部分位置占满,使外来者难以建立稳定关系。
如果原有菌群因疾病、饮食剧烈变化或药物作用而明显减少,部分生态位置可能暂时空出,沙门氏菌获得立足机会的概率也可能上升。
2
争夺营养,让沙门氏菌难以持续扩增
空间只是第一步,细菌能否长期存在,还取决于能否获得足够营养。
肠道共生菌会持续消耗糖类、氨基酸、矿物质和其他生长所需物质。沙门氏菌进入后,需要与原有菌群争夺这些有限资源。
共生细菌通过多种策略抑制沙门氏菌在肠道环境中的定殖
编辑
doi.org/10.1080/19490976.2024.2424914
大肠杆菌和肠杆菌科成员等共生菌株产生抗菌肽和其他生物活性代谢物,进一步阻碍病原体的定植。此外,这些共生菌占据关键生态位,通过空间排斥和代谢优势阻止病原体的进入和定殖。
带鞭毛的大红色细菌代表沙门氏菌。
相关研究发现,不同共生菌可以通过竞争特定碳源、铁、锌和其他营养物质限制沙门氏菌。保护作用取决于整个菌群是否具有足够的资源竞争能力。
这也说明,单纯观察“菌种多不多”并不能完整判断肠道是否具备较强定植抗性。重要的是,菌群是否保留了占据生态位和消耗关键资源的功能。
共生大肠杆菌是目前研究较多的一类。小鼠来源的共生菌株大肠杆菌Mt1B1,可以与鼠伤寒沙门氏菌竞争半乳糖醇等碳源,减少沙门氏菌能够利用的生长资源。
人体来源的大肠杆菌Nissle 1917,也就是EcN,可以通过竞争铁、锌以及氧等资源,限制沙门氏菌在炎症肠道中的扩增。EcN还能够产生微菌素,直接抑制具有相应铁载体受体的沙门氏菌。因此,同一个共生菌株可以同时参与营养竞争和直接抑菌。
黏液相关共生菌Mucispirillum schaedleri能够利用硝酸盐,与沙门氏菌竞争呼吸所需的电子受体,并影响其侵袭相关基因表达。
3
代谢产物塑造不利于沙门氏菌的环境
共生菌在利用食物和黏液成分时,会产生短链脂肪酸等代谢物。
这些物质可以改变肠腔酸碱度、上皮代谢和局部氧环境,从而影响沙门氏菌的生长方式。
动物研究显示,部分拟杆菌产生的丙酸可以干扰鼠伤寒沙门氏菌的胞内pH稳态,限制其生长;给予丙酸或转移具有产丙酸能力的拟杆菌,也能够增强小鼠对沙门氏菌的定植抗性。
例如,产丁酸菌能够支持结肠上皮的正常能量代谢,使靠近肠腔一侧的氧被充分消耗,帮助维持低氧环境。这种环境更适合许多严格厌氧共生菌,却不利于沙门氏菌利用呼吸代谢迅速扩增。
关于炎症如何改变氧和其他代谢资源,将在后文单独讨论。
4
部分共生菌还会直接抑制沙门氏菌
一些肠道细菌能够产生细菌素或其他抑菌分子,直接限制邻近细菌。
例如,乳酸片球菌Pediococcus acidilactici产生的细菌素,在体外研究中能够抑制鼠伤寒沙门氏菌生物膜形成,同时限制浮游状态细菌的生长。
部分益生芽孢杆菌则可以产生subtilosin A、subtilin等细菌素,主要表现为抑制沙门氏菌生物膜形成,对浮游状态细菌的杀伤并不明显。
部分共生肠杆菌还可以与沙门氏菌竞争铁、氧和其他资源。此类作用往往具有明显的环境依赖性:同一种细菌在不同菌群背景、营养条件或炎症状态下,效果可能不同。
因此,不宜把某一个菌种简单标记为“保护菌”。
5
菌群还会帮助人体维持屏障
肠道菌群与上皮并不是彼此独立的。
正常菌群产生的代谢物,可以促进黏液分泌、上皮紧密连接和抗菌分子表达,使微生物竞争与人体屏障形成联合防御。
一旦菌群受到明显扰动,影响的不只是微生物数量,还可能包括黏液、上皮代谢和局部免疫功能。
动物研究常通过抗生素预处理削弱菌群,使沙门氏菌更容易定植并诱发炎症。这类模型说明,抗生素造成的菌群扰动可能降低定植抗性。
如果沙门氏菌无法获得稳定位置和足够资源,就可能随肠内容物排出;如果它成功突破这种生态防线,下一步才是靠近肠上皮、启动侵袭程序,并真正进入感染过程。下一章将讨论:沙门氏菌怎样从“已经到达肠道”进一步发展为“侵入上皮并引起疾病”。
沙门氏菌成功到达肠道并突破菌群的定植抗性后,并不意味着感染已经完成。要引起疾病,它还需要靠近肠上皮、完成黏附和侵入,并在宿主细胞内维持生存。
这一过程的关键,是沙门氏菌开始与人体组织发生直接相互作用。
1
先靠近并黏附肠上皮
肠内容物始终在移动。沙门氏菌如果不能及时靠近黏膜,就可能被继续向后输送并排出。
它可以借助鞭毛运动,向适合自身生存的区域移动,并利用表面黏附结构与黏液或上皮细胞形成接触。
肠腔中的沙门氏菌常驻形式
编辑
doi.org/10.1016/j.micres.2024.128013
黏附的意义在于,它让沙门氏菌不再只是悬浮在肠腔中的外来细菌,而是获得了进一步作用于上皮的机会。
这一步主要依赖菌毛和其他表面黏附结构。以I型菌毛为例,位于菌毛顶端的FimH能够识别宿主细胞或黏膜表面的特定分子,使细菌获得更稳定的接触。
部分沙门氏菌还会分泌由蛋白、多糖和胞外DNA构成的基质,形成生物膜。生物膜不仅让细菌更容易附着在肠道或环境表面,还可以延缓抗菌肽和部分抗生素对细菌的作用。因此,“能否黏住”本身就是决定短暂经过还是进一步感染的重要分界点。
不过,黏附本身还不等于侵入。决定沙门氏菌能否突破上皮的,是其后续启动的毒力程序。
编辑
2
利用SPI-1侵入上皮细胞
沙门氏菌的重要侵袭机制之一,是由沙门氏菌致病岛1编码的Ⅲ型分泌系统,通常简称为SPI-1或T3SS-1。
T3SS-1是沙门氏菌经典的触发式侵入装置。沙门氏菌通常先利用菌毛等结构接近并固定在上皮表面,随后通过T3SS-1把多种效应蛋白送入宿主细胞。
编辑
这些效应蛋白会操纵Rac1、Cdc42等细胞骨架调控通路,使上皮细胞的肌动蛋白重新排列,细胞膜形成明显褶皱,最终主动把细菌包入细胞内部。沙门氏菌因此不是单纯依靠机械力量钻进上皮,而是在改写宿主细胞自身的吞入程序。
沙门氏菌并非只有一条侵入路线
除了前面介绍的T3SS-1触发式侵入,沙门氏菌还可以通过其他途径进入肠上皮或黏膜组织。
其中一种是拉链式侵入。
在这种情况下,沙门氏菌表面的Rck、PagN、OmpV等蛋白与宿主细胞表面的受体结合,使细胞膜像逐步拉上拉链一样包裹细菌。与触发式侵入相比,这种方式引起的膜变化通常更加局部。
此外,沙门氏菌还可以利用肠道派尔集合淋巴结表面的M细胞跨越上皮,也可能被特定吞噬细胞摄取后带入黏膜组织。
因此,SPI-1是沙门氏菌重要的侵入系统,但不是唯一通道。不同侵入途径之间可能相互补充,这也意味着,某一条侵入路线受阻后,细菌未必会完全失去进入组织的能力。相关研究将沙门氏菌侵入概括为触发式、拉链式、M细胞途径、特定吞噬细胞途径及其他特殊机制。
3
进入细胞后,沙门氏菌还要避免被清除
细菌进入上皮细胞或被巨噬细胞吞噬后,通常会被包裹在细胞内囊泡中。
正常情况下,这类囊泡会逐渐与宿主的杀菌系统融合,使细菌受到酸化、活性氧、抗菌蛋白和营养限制。
沙门氏菌则能够改造这一细胞内环境,形成所谓的“沙门氏菌含菌液泡”。
此时,另一套由沙门氏菌致病岛2编码的Ⅲ型分泌系统,也就是SPI-2或T3SS-2,开始发挥重要作用。它可以向宿主细胞内输送效应蛋白,改变囊泡运输和细胞杀菌过程,从而帮助沙门氏菌继续存活和复制。
这也是为什么沙门氏菌一旦进入细胞,清除难度会明显增加。
编辑
沙门氏菌含菌液泡是会经历早期、中期和晚期的成熟过程。沙门氏菌通过T3SS-2输送多种效应蛋白,干扰Rab蛋白介导的囊泡运输、溶酶体融合和自噬识别,使含菌液泡避免被完整送入宿主的杀菌通路。
成熟的含菌液泡还可能向外伸出被称为“沙门氏菌诱导丝状结构”(Salmonella-induced filaments,SIF)的膜性管道。这些结构与宿主的膜运输和细胞骨架系统相连,有助于细菌维持含菌液泡并获得复制所需的物质。
不过,含菌液泡并不是绝对安全区。如果液泡受损,沙门氏菌仍可能被溶酶体或自噬系统清除。少部分细菌则可能逃出液泡,在上皮细胞胞质中快速增殖,形成所谓的“超复制”。
因此,进入宿主细胞并不意味着感染已经摆脱免疫控制,而是意味着双方的主要战场从肠腔转移到了细胞内部。
躲进细胞后,人体怎样继续追击?
无论是在上皮细胞内,还是被巨噬细胞、树突状细胞等吞噬细胞摄取后,沙门氏菌都要继续面对宿主的细胞内防御。
局部免疫细胞可以识别沙门氏菌的脂多糖、鞭毛蛋白以及被送入细胞内部的细菌成分,释放IL-1β、IL-18等炎症信号。随后,沙门氏菌特异性的CD4⁺ Th1细胞会产生IFN-γ,进一步激活巨噬细胞,增强其控制和杀灭细胞内细菌的能力。
编辑
因此,人体对付沙门氏菌并不只是依靠抗体在细胞外拦截,还需要T细胞向巨噬细胞发出指令,处理已经进入细胞内部的病原体。
注:现有证据主要来自小鼠感染模型,尤其适合解释侵袭性或系统性沙门氏菌感染。
在这场细胞内部的攻防发生之前和同时,肠道局部也会迅速启动炎症反应。腹泻、腹痛和发热,正是这种防御反应在临床上的表现。
4
腹泻和发热是怎样出现的?
沙门氏菌侵入上皮后,人体会迅速启动免疫反应。
上皮细胞和局部免疫细胞识别细菌及其结构后,会释放炎症信号,招募中性粒细胞,并增加肠腔中的液体和电解质分泌。
这些变化共同造成:
因此,症状不只是细菌直接损伤的结果,也来自人体清除感染时产生的炎症反应。
症状强弱与检测到的菌量并不一定完全一致。有人菌量不高,但炎症反应明显;也有人已经发生感染,却只有轻微不适。
5
为什么少数人会出现更严重的感染?
多数免疫功能正常的成年人,非伤寒沙门氏菌感染主要表现为局限于肠道的胃肠炎。
但如果沙门氏菌穿过上皮,并在吞噬细胞中持续生存,就可能进入肠系膜淋巴结,少数情况下进一步扩散至血液、肝脏、脾脏或其他组织。
沙门氏菌的系统性感染
编辑
doi.org/10.1016/j.micres.2024.128013
成功入侵肠道的沙门氏菌可以被巨噬细胞或树突状细胞吞噬。然后,它扩散到肠系膜淋巴结,进入血液,然后扩散到肝脏和脾脏,最终导致沙门氏菌在全身传播。
是否发生这种肠外扩散,与多个因素有关:
因此,同样是沙门氏菌感染,健康成年人可能只出现短期腹泻,而婴幼儿、老年人或免疫功能低下者则更需要警惕严重感染。
沙门氏菌侵入肠上皮后,人体会迅速启动炎症反应。
这套反应的首要目的,是限制细菌扩增、清除受感染细胞,并阻止病原体继续向组织深处扩散。中性粒细胞、巨噬细胞、活性氧和活性氮等防御机制,都会参与这一过程。
但炎症并不是只作用于沙门氏菌的“精准武器”。它同时会改变肠道中的氧、营养、电子受体和菌群结构。沙门氏菌恰好具备利用这些变化的能力,因此可能在炎症环境中获得新的生长优势。
也就是说,炎症既是人体清除感染的重要手段,也可能在某些条件下,为沙门氏菌创造更适合扩增的环境。
炎症会改变肠道中的氧环境
前面提到,正常菌群及其代谢活动有助于维持结肠相对低氧的环境,并通过营养竞争限制沙门氏菌扩增。
炎症发生后,这种平衡可能被打破。
部分产丁酸菌可能减少,上皮对丁酸的利用下降,进入肠腔的氧随之增加。原本以严格厌氧菌为主的低氧环境,开始更有利于兼性厌氧肠杆菌科细菌。
动物研究显示,丁酸产生梭菌减少后,肠腔氧水平上升,可推动沙门氏菌在肠道内扩增。
这并不是说氧本身造成感染,而是炎症改变了不同细菌之间的竞争条件。
编辑
炎症还会产生新的“呼吸资源”
细菌获得能量时,需要电子供体和电子受体。正常低氧肠道中,可供沙门氏菌进行呼吸的电子受体较少,它更多依赖效率较低的发酵。炎症产生的活性氧和活性氮,则可以推动硝酸盐、四硫代硫酸盐等氧化物形成。
这些物质可以被沙门氏菌利用,进行硝酸盐呼吸或四硫代硫酸盐呼吸。
研究指出,炎症环境可提供氧、氧化氮化合物和氧化硫化合物等电子受体,使沙门氏菌获得比部分共生菌更高的能量效率。
因此,人体制造这些氧化物原本是为了攻击病原体,却也无意中创造了沙门氏菌可以利用的代谢条件。
这些含硫资源,也可能经过菌群共同加工
四硫代硫酸盐和硫代硫酸盐等含硫电子受体,并不完全是宿主单独产生的。肠道菌群也可能参与其前体物质的生成。
一项未进行抗生素预处理的小鼠多组学研究发现,沙门氏菌感染后,肠道中的硫酸化胆汁酸、硫酸化黄酮以及氧化蛋氨酸等有机硫化合物发生了明显变化。肠道细菌可以利用硫酸酯酶或含硫氨基酸代谢通路,从这些有机物中释放硫酸盐或硫化氢。
在这一小鼠模型中,粪肠球菌、鸡肠球菌和沙门氏菌贡献了大部分检测到的硫酸酯酶转录;嗜黏蛋白阿克曼菌、Luxibacter、Anaerotruncus及其他部分梭菌,也表达了参与蛋氨酸和半胱氨酸转化的相关基因。
这些菌群产生的硫化氢随后可在炎症产生的活性氧作用下,被氧化成硫代硫酸盐和四硫代硫酸盐。沙门氏菌则具备利用这些物质进行呼吸的能力,从而获得相对于许多发酵型共生菌的能量优势。
因此,炎症环境中的含硫“呼吸资源”,可能是宿主反应、菌群代谢和沙门氏菌利用能力共同作用的结果。
炎症还会改变碳源由谁产生、由谁利用
炎症不仅改变电子受体,也会重新组织肠道中碳源的生产和利用关系。同一种代谢物,可能由一种细菌产生,又被另一种细菌利用。
编辑
乳酸就是一个代表性例子。
在一项小鼠多组学研究中,沙门氏菌感染组粪便中的乳酸平均丰度约为未感染组的3.9倍。
宏转录组结果显示,约翰逊乳杆菌、动物乳杆菌、粪肠球菌、鸡肠球菌等乳杆菌,可能是感染环境中乳酸的重要来源。沙门氏菌则表达了利用D-乳酸和L-乳酸的相关基因,提示它可能把宿主和其他菌群产生的乳酸作为碳源。
但乳酸并不只会流向沙门氏菌。Luxibacter、Acetatifactor、Anaerotruncus等部分梭菌类群,也可能利用乳酸并将其转化为丁酸或乙酸,从而与沙门氏菌形成底物竞争。
因此,感染肠道中的乳酸代谢可能同时存在交叉喂养和资源竞争。某一种菌或代谢物究竟有利还是不利,取决于它处于怎样的菌群网络和炎症环境中。
除乳酸外,研究还检测到沙门氏菌表达利用琥珀酸、1,2-丙二醇、乙醇胺、岩藻糖和阿拉伯糖等碳源的相关基因。这说明沙门氏菌能够根据炎症环境中的资源变化,灵活调整自身的代谢策略。
注:这些机制大量来自小鼠模型、无菌或简化菌群模型以及代谢组研究。
炎症和沙门氏菌形成正反馈
在某些情况下,可能出现以下过程:
沙门氏菌侵入上皮→ 人体启动炎症→ 氧、电子受体和碳源发生变化→ 部分共生菌竞争力下降→ 沙门氏菌获得扩增优势→ 更多细菌继续刺激炎症
编辑
这是一种可能的正反馈。这构成了一种可能的正反馈:炎症原本是为了限制感染,却可能改变肠道生态,使沙门氏菌获得新的代谢优势。
但它不会无限持续。肠道运动、免疫清除、上皮修复和菌群恢复都会限制沙门氏菌。最终是被清除、短期携带还是继续感染,取决于病原体利用环境的能力与宿主防御之间的平衡。
上一章讨论了炎症如何改变肠道中的氧、电子受体和碳源,使沙门氏菌获得新的生长条件。
但肠道中的化学物质并不只是营养。一些物质还可以被沙门氏菌识别为环境信号,告诉它:当前更适合侵入上皮,还是降低侵袭程序、转而在肠腔中增殖和维持定植。
不同肠段,会向沙门氏菌发出不同信号
沙门氏菌进入肠道后,并不会始终维持相同的侵袭状态。
在十二指肠,较高浓度的胆汁会抑制部分侵入上皮所需的功能,避免沙门氏菌过早启动强烈的侵袭和炎症反应。
到达回肠后,局部浓度较高的甲酸可以促进侵袭相关基因表达,使回肠成为沙门氏菌较重要的侵入部位。
编辑
继续进入结肠后,化学环境再次发生变化。这里存在较多短链和长链脂肪酸,其中一些能够抑制沙门氏菌的侵袭基因,使其从积极侵入上皮的状态,逐渐转向肠腔内增殖和结肠定植。
因此,沙门氏菌的毒力程序并不是简单地“打开”或“关闭”,而是受到肠道位置和局部化学环境的动态调节。
侵袭能力越强,不一定越有利于长期生存
沙门氏菌的SPI-1侵袭系统由大量结构蛋白和效应蛋白组成。合成和维持这套装置需要消耗相当多的能量与物质,代谢成本较高。
一项研究使用了一种不能正常响应脂肪酸抑制信号的沙门氏菌突变株。该突变株会持续表达较高水平的SPI-1:
进一步删除SPI-1后,这种长期生存劣势随之消失,说明问题主要来自持续制造SPI-1装置本身的代谢成本,而不只是细菌是否真正进入了上皮细胞。
因此,“侵袭基因表达下降”不能简单理解为沙门氏菌已经失去危害。有时,这意味着它正在从积极侵袭转向更有利于增殖、定植和传播的状态。
编辑
c2-HDA研究提供了一个具体例子
这项研究重点分析了肠道相关细菌嗜麦芽寡养单胞菌,在氧化应激条件下,产生的一种脂肪酸信号——顺式-2-十六碳烯酸,简称c2-HDA。
c2-HDA属于扩散性信号因子家族。沙门氏菌感知这种分子后,c2-HDA可以作用于SPI-1的核心调控蛋白HilD,促进HilD降解,并干扰其与DNA结合,从而降低hilA、sopB等侵袭相关基因的表达。
研究发现,在氧化应激和亚硝化应激条件下,嗜麦芽寡养单胞菌会通过RpfF相关通路增加c2-HDA的产生。沙门氏菌诱发的炎症可以激活巨噬细胞,产生活性氧和活性氮;这些炎症信号又可能改变嗜麦芽寡养单胞菌的代谢输出,使其释放更多c2-HDA。
沙门氏菌随后感知c2-HDA,降低SPI-1表达,将一部分原本用于制造侵袭装置的资源转向细菌增殖。
研究者还专门检验了c2-HDA是不是仅仅被沙门氏菌当作脂肪酸碳源。
结果显示,即使沙门氏菌不能正常通过β-氧化利用脂肪酸,c2-HDA仍然可以促进其生长;而不能响应c2-HDA调控信号的突变株则没有获得这种优势。这说明c2-HDA在这里主要发挥的是调控信号作用,而不是简单地为沙门氏菌提供食物。
这一结果可以概括为:
沙门氏菌诱发炎症→ 局部氧化应激增强→ 共生菌改变代谢物产生→ 沙门氏菌感知代谢信号→ 调整侵袭和增殖策略
这是一种“宿主-菌群-病原体”三方信号链。沙门氏菌不仅会利用炎症产生的氧和电子受体,还能利用炎症对其他菌群成员造成的代谢变化,调整自己的感染策略。
降低炎症,不一定意味着沙门氏菌数量减少
这个研究中还有一个看似矛盾的结果。
在产生c2-HDA的嗜麦芽寡养单胞菌存在时,沙门氏菌的侵袭基因表达和结肠炎症指标下降,但沙门氏菌的结肠定植能力反而增强。能够感知c2-HDA的沙门氏菌,比不能感知这一信号的突变株获得了更明显的定植优势。
这说明:
炎症减轻、侵袭基因降低和病原体被完全清除,并不是同一件事。
病原体有时可以通过降低高成本、高炎症的侵袭程序,转向症状相对缓和但更适合持续定植的状态。
注:这只是在特定实验模型中观察到的现象,不能据此推断无症状携带者都存在同样的机制。
嗜麦芽寡养单胞菌曾在人体结肠隐窝或黏膜相关样本中被发现,但在人体粪便菌群研究中并不普遍,不能将其视为人人都具有的核心肠道菌。
这项研究主要基于体外实验和小鼠模型。这项研究说明,肠道菌群不仅通过竞争资源影响病原体,还可能通过化学信号改变病原体的行为。
沙门氏菌也不是一种始终保持高侵袭状态的细菌。它会根据肠道位置、炎症水平和菌群代谢信号,在侵袭、增殖和持续定植之间调整策略。
沙门氏菌能够突破肠上皮、进入宿主细胞,并根据肠道环境调整侵袭和定植策略,但这仍不意味着感染一定会持续发展。
细菌最终是被清除、短期存在,还是继续扩增并向肠道以外传播,很大程度上取决于人体能否及时控制已经进入细胞和组织的沙门氏菌。
控制细胞内细菌,是阻止扩散的关键
沙门氏菌进入巨噬细胞等吞噬细胞后,人体与病原体的主要较量会转移到细胞内部。
对抗沙门氏菌感染的适应性免疫反应
编辑
doi.org/10.1016/j.imlet.2024.106930
吞噬细胞会通过酸化、活性氧、活性氮、营养限制等方式杀伤细菌。与此同时,宿主细胞还可以识别沙门氏菌进入细胞内部的成分,释放IL-1β、IL-18等炎症信号。
其中,IL-18可以增强CD4⁺ Th1细胞产生IFN-γ的能力。IFN-γ进一步激活巨噬细胞,提高其控制细胞内沙门氏菌的能力。
因此,人体对付沙门氏菌,并不只是依靠抗体在细胞外识别细菌,还需要T细胞和吞噬细胞协同处理已经进入细胞内部的病原体。
如果这一控制及时建立,感染通常会逐步受到限制;如果吞噬细胞杀菌能力、T细胞反应或相关免疫通路受到明显影响,沙门氏菌持续存在和肠外扩散的风险可能增加。
免疫反应既要有效,也不能过度
炎症的目的,是限制细菌扩增并清除感染,但免疫反应并不是越强越好。
因此,决定感染结局的并不是某一种炎症因子越高越好,而是人体能否形成一种有效、协调而不过度的免疫反应。
谷禾肠道菌群检测报告中同时涉及IL-1β、IL-18、TNF-α、IFN-γ等炎症相关指标,它们可以作为免疫激活或黏膜炎症的线索,但通常不具有沙门氏菌特异性。
注:单独一个炎症指标,不能证明沙门氏菌正在引起活动性感染;指标变化是否同时伴有腹泻、发热、腹痛或其他临床表现。
为什么健康成年人往往能够自行控制感染?
对于多数免疫功能正常的成年人,非伤寒沙门氏菌感染通常表现为自限性胃肠炎,也就是说,人体往往可以依靠自身免疫系统逐步控制感染。
婴幼儿、老年人、免疫功能低下者,以及存在严重基础疾病的人,可能因为屏障功能、吞噬细胞杀菌能力或适应性免疫不足,更容易出现严重感染或肠外扩散。
因此,同样一次暴露,最终结局可能不同:
免疫反应并不是越强越好
免疫反应的目标不是制造最大程度的炎症,而是在清除病原体的同时尽量减少组织损伤。
反应过弱,沙门氏菌可能继续扩增和扩散;反应过强,则可能造成明显腹泻、黏膜损伤和更剧烈的炎症。
因此,有利的状态是有效而不过度的免疫控制。
看现在,有没有症状?
-没有任何明显不适
如果目前没有腹泻、发热、明显腹痛、恶心、呕吐等症状,日常状态也正常,那么一次菌群检测中发现沙门氏菌,并不能直接说明正在发生活动性感染。
它可能对应近期的一次暴露、短暂经过,也可能是低水平存在。这种情况下,没有必要因为看到“沙门氏菌”几个字就立即把自己当成感染患者,更不建议自行使用抗生素。
为什么不能仅凭检测结果自行选择抗生素?
沙门氏菌可能携带多种耐药基因。这些基因可以通过产生药物灭活酶、保护抗生素作用靶点或增强药物外排等方式,降低抗生素对细菌的抑制和杀伤作用。
耐药基因,会怎样影响抗生素的作用?
例如,blaTEM和blaCTX-M类基因主要与β-内酰胺类药物耐药有关(这些基因导致沙门氏菌对氨苄西林、四环素、氯霉素和复方新诺明等传统常用药物普遍耐药)。
编辑
doi: 10.1080/19490976.2023.2229937
耐药基因还可能位于质粒等可移动遗传元件上,在细菌之间传播,使一个菌株同时获得对多类抗菌药物的耐受能力。
一株沙门氏菌可能同时携带多种耐药基因,从而形成多重耐药。不同血清型和不同地区流行菌株携带的耐药基因组合并不相同,因此耐药情况需要结合具体菌株进行判断。
注:抗生素清除缓慢并不一定完全都是耐药基因造成的。即使实验室药敏结果仍显示敏感,沙门氏菌在感染组织中也可能因营养匮乏、生长速度降低而对抗生素杀伤表现出暂时耐受。
因此,耐药基因检测只能提示细菌可能具有什么耐药能力,培养药敏反映细菌在实验室条件下对药物是否敏感,而抗生素在人体内能否顺利清除细菌,还会受到感染部位、细菌生长状态和人体免疫反应等因素影响。
可以先回顾近期有没有可能的暴露,例如吃过未充分加热的禽肉、蛋类或肉制品,是否存在生熟食物交叉污染,是否接触过可能携带沙门氏菌的动物或其排泄物。
继续观察。
-检出沙门氏菌,同时正在腹泻、发热或腹痛
这种情况下,这个结果就更值得重视。
尤其是近期突然出现明显腹泻、腹痛、发热、恶心或呕吐,同时又存在可疑饮食或动物接触史,沙门氏菌检出与当前胃肠道症状之间的关联需要进一步评估。
多数免疫功能正常成年人发生非伤寒沙门氏菌胃肠炎后可以逐渐自行恢复,但症状严重程度存在明显个体差异。
但如果出现持续高热、明显脱水、血便、严重腹痛,或者症状持续加重,应及时去医院。
婴幼儿、老年人、免疫功能低下者以及存在严重基础疾病的人,也需要更加谨慎。这种情况需要及时就医,谷禾肠道菌群检测报告可以辅助临床医生判别,或者结合专门的病原检测、培养以及其他临床信息进一步确认。
采样前,是不是刚有过一轮胃肠道症状?
有这样一种情况:
前几天刚刚腹泻、发热或肚子不舒服,等到采样或拿到报告时,症状已经基本消失了。
这时候仍然检出沙门氏菌,并不矛盾。
症状缓解,主要说明肠道炎症和宿主反应正在恢复,并不意味着沙门氏菌一定在症状消失的那一天同步完全清除。
注:临床症状恢复和微生物学上的完全清除,不一定发生在同一个时间点。
如果近期确实经历过一次急性胃肠道症状,再结合可疑饮食史,报告中的沙门氏菌就可能与前一段时间的感染或暴露有关。
此时更重要的是观察症状是否已经稳定恢复。
近期有没有比较明确的暴露机会?
回想检测前一段时间是否有:
果蔬、沙拉等,也可能受到沙门氏菌污染
生产链长、污染源难追溯
2020年,北美曾发生一起与红洋葱相关的纽波特沙门氏菌(Salmonella Newport)暴发。调查将涉事产品追溯至美国加利福尼亚州的一家农场,这也是美国近30年来规模较大的沙门氏菌暴发之一。但即使经过流行病学调查,研究人员仍未能最终确定细菌最初从哪里进入生产链。
这类情况并不罕见。果蔬从农田到餐桌,要经历灌溉、施肥、采收、清洗、分拣、包装、冷藏和运输等多个环节。受到动物粪便或污水影响的灌溉水、未经充分处理的有机肥、受污染的清洗用水、加工设备和包装环境,都可能将沙门氏菌带到食物表面。由于洋葱等产品通常不会在食用前接受充分加热,一旦污染发生,后续就缺少彻底杀灭细菌的步骤。
同一血清型可能具有多种宿主和传播来源
2019年,美国还报告了与新鲜木瓜有关的 乌干达沙门氏菌(Salmonella Uganda)暴发,涉事产品被追溯至墨西哥的一家农场。调查认为,污染可能发生在采收前、采收过程中或采收后的处理环节,但由于生产和流通记录不完整,最终仍无法确定具体污染节点。值得注意的是,乌干达沙门氏菌此前还曾与猪肉和宠物鬃狮蜥相关,说明部分血清型可以跨越不同动物、食品和环境来源传播。
这两个案例说明,果蔬相关的沙门氏菌风险并不是蔬菜水果自己产生了细菌,而是细菌借助水、土壤、动物、设备和人员操作进入了食品生产链。与肉类不同,很多果蔬、沙拉等即食食品没有最终加热环节,因此前端的一次污染,可能一直保留到入口时。
对普通人而言,这并不意味着要减少果蔬摄入,而是要认识到“新鲜”和“即食”并不等于没有微生物风险。购买预切水果、沙拉和即食凉菜后,应注意冷藏条件和保质时间;处理完整果蔬时,应先清洁双手和操作台面,并避免让清洗后的食物再次接触生肉汁液、未经清洁的刀具或砧板。
没有症状,但还是有点担心,怎么办?
对于目前完全没有症状、也不属于高风险人群的人,一次菌群检测发现非伤寒沙门氏菌,通常不需要因为这一项结果立即采取激进处理。
更实际的做法是:
先观察身体状态,同时减少新的暴露机会。
如果仍然比较在意这个结果,可以在间隔一段时间后,在身体状态和采样条件相对稳定的情况下再次检测,看看这一信号是否仍然存在。
如果再次检出,则说明这个信号并非只出现在第一次样本中,值得进一步结合症状、暴露史以及具体情况分析。
总的来说,谷禾肠道菌群检测更适合作为理解肠道微生态状态的一个窗口,而不能脱离症状和临床背景,把某一个菌的检出直接当成疾病诊断。本身属于高风险人群或者已发生感染症状人群,应及时进入临床诊疗路径。
如果谷禾肠道菌群检测中检出沙门氏菌,真正能够落实到个人层面的干预主要有两部分:
近年来研究者也在探索能否通过益生菌、益生元或合生元、菌群代谢物以及植物来源活性物质,增强肠道原有的定植抗性,或者直接降低沙门氏菌的定植和致病能力。
益生菌
植物乳杆菌 Lactobacillus plantarum Lp01
Liu 等在小鼠感染模型中使用来源于猪肠道的 Lp01,益生菌浓度为 5×10⁹ CFU/mL,随后以 5×10⁸ CFU/mL 的S.Typhimurium ATCC14028进行感染。结果显示,Lp01 可改善小鼠存活,并降低肝脏和脾脏中的鼠伤寒沙门氏菌水平。
干酪乳杆菌 Lactobacillus casei ATTC334
El-Sharkawy 等开展的是肉鸡模型。益生菌浓度为 2×10⁹ CFU/mL,挑战用 S. Typhimurium 为 1×10⁸ CFU/mL。研究观察到,使用该菌株后,从盲肠扁桃体回收到的 S. Typhimurium 减少。
婴儿双歧杆菌Bifidobacterium infantisBL2416
肉鸡实验,益生菌浓度 2×10⁹ CFU/mL,S. Typhimurium 挑战浓度 1×10⁸ CFU/mL。研究观察到 S. Typhimurium 数量减少,同时 IFN-γ 和 TNF-α 水平增加。
枯草芽孢杆菌 Bacillus subtilis CSL2
在蛋鸡模型中使用 1×10⁷ CFU/g 的 B. subtilis CSL2,并以 1×10⁸ CFU/mL 的 S. Gallinarum KVCC-BA0700722进行挑战。研究报告粪便菌群状态趋于正常,同时乳杆菌增加。
注:这里研究的是禽类沙门氏菌模型,并不能直接套用于人体非伤寒沙门氏菌感染。
枯草芽孢杆菌 B. subtilis HU58 + 地衣芽孢杆菌 B. licheniformis SC307
S. Enteritidis 挑战浓度为 4×10⁹ CFU/mL。研究结果显示,这组芽孢杆菌干预可降低肉鸡胃肠道中的沙门氏菌负荷。
大肠杆菌 Nissle 1917(EcN)
EcN 可以与沙门氏菌竞争铁等矿物资源,从而降低 S. Typhimurium 的肠道定植;EcN 产生的微菌素还可在炎症环境中限制 S. Typhimurium,而对整体菌群的影响相对有限。
益生芽孢杆菌(probiotic Bacilli)
一项体外生物膜研究:益生芽孢杆菌产生的 subtilosin A、subtilin 等细菌素可以抑制沙门氏菌生物膜形成,而并未明显杀伤浮游状态的细菌。
益生元、合生元
Asahara 等在 2001 年的小鼠研究中,将双歧杆菌与反式半乳糖基化低聚糖(transgalactosylated oligosaccharides)联合使用,结果显示小鼠对 S. Typhimurium 感染的抵抗力提高。
膳食、营养干预
维生素B12
一项小鼠研究发现,维生素B12缺乏会减少短链脂肪酸产生菌,并有利于 S. Typhimurium 扩增;补充维生素B12后,这些变化可以得到恢复。
维生素A
2024 年的一项小鼠研究显示,维生素A缺乏会损害中性粒细胞对沙门氏菌的控制,使动物更容易发生播散性非伤寒沙门氏菌感染。
膳食纤维
肠道细菌发酵膳食纤维可产生乙酸、丙酸和丁酸等短链脂肪酸。体外实验显示,从粪便材料中分离出的乙酸和丁酸能够抑制 S. Enteritidis 生长,尤其是在厌氧和接近小鼠结肠pH的条件下。
恢复正常、多样化饮食和菌群代谢功能可能有益,但不能把某一种纤维或糖类简单视为“抗沙门氏菌益生元”。
菌群代谢物
丙酸
研究显示,丙酸能够抑制S. Typhimurium;综述同时提到,直接给予丙酸或能够产生丙酸的拟杆菌属,都可以增强定植抗性。
琥珀酸
研究表明,给予琥珀酸可促进有益梭菌定植、降低肠道中的 S. Typhimurium 负荷,并降低肠道氧浓度。不过研究同时提醒,沙门氏菌在其他环境下也可能利用宿主来源琥珀酸增强自身毒力,因此这一作用具有明显环境依赖性。
γ-氨基丁酸(GABA)
在小鼠模型中,GABA以及伴随增加的 Alistipes、Lactobacillus 与沙门氏菌感染受抑制相关。
这些结果说明后生元或微生物代谢物也是值得研究的方向,但同样还不能直接转化成普通人的补充剂处方。
植物化学物质
酚类、多酚与单宁
酚类相关物质包括黄酮、儿茶素、白藜芦醇,以及缩合单宁、没食子单宁、黄烷醇没食子酸酯、鞣酸和没食子酸。
研究表明,这类物质可通过影响细胞壁或细胞膜、螯合金属离子、降低部分细菌蛋白酶活性,以及干扰群体感应等途径,抑制沙门氏菌生长或定植;部分单宁还被讨论为可能影响黏液、紧密连接和局部免疫反应。
精油成分与萜类
研究列出具体成分包括香芹酚(carvacrol)、百里香酚(thymol)、丁香酚(eugenol)、肉桂醛和反式肉桂醛(cinnamaldehyde/trans-cinnamaldehyde)、香叶醇(geraniol),以及茶树油中的萜品-4-醇(terpinen-4-ol)、1,8-桉叶素(1,8-cineole)、α-松油醇(α-terpineol)、萜烯和倍半萜。
例如,丁香酚是丁香等植物中的一种活性成分。
Zhao 等的研究显示,丁香酚能够显著下调 S. Typhimurium多种与T3SS和毒力相关的基因,包括 SipA、SipC、SpiC、MisL、HilA 和 HilD。
生物碱及其他活性成分
这些物质包括小檗碱(berberine)、5′-甲氧基氢化可豆素(5′-methoxyhydnocarpin)、胡椒碱(piperine)、β-间苯二酚酸(β-resorcylic acid) 和辣椒油树脂(capsicum oleoresin)等。
小檗碱与5′-甲氧基氢化可豆素被描述为可共同促进小檗碱在细菌内积累并抑制多药耐药外排泵;胡椒碱与部分氨基糖苷类抗生素的组合,表现出协同或杀菌活性。
白术提取物
Gao 等研究的是白术氯仿提取物。这是一项以沙门氏菌生物膜、黏附和宿主细胞侵袭为终点的体外/细胞实验。
研究发现,该提取物能够抑制 S. Typhimurium 生物膜形成,并下调与鞭毛、菌毛和生物膜相关的 filA、filC、fimA、fimH、csgA 和 csgB 等基因,随后观察到沙门氏菌黏附和侵袭宿主细胞的能力下降。
植物化学物质及其对沙门氏菌的最低抑菌浓度
编辑
编辑
doi: 10.3389/fvets.2023.1188752
植物化学物质 + 抗生素
植物化学物质与抗生素联用,可能通过抑制外排泵、破坏细胞膜、干扰生物膜形成,以及抑制药物灭活或靶位修饰机制,提高耐药沙门氏菌对抗生素的敏感性。
研究列举了丁香酚或肉桂醛与抗生素联用破坏 S. Typhimurium 生物膜的结果;百里香酚、胡椒碱与阿米卡星、卡那霉素或链霉素联用也表现出协同抑菌作用。
植物化学物质与抗生素协同活性及其最小抑菌浓度
编辑
doi: 10.3389/fvets.2023.1188752
注:现有证据主要来自体外研究,并不是自行把植物提取物或精油与抗生素联合使用的依据。临床应用仍需进一步验证。
沙门氏菌能否在肠道定植并诱发疾病,是菌株特性、暴露剂量、肠道屏障完整性、肠道微生态基线以及宿主免疫状态共同作用的结果。
伴随微生态机制研究持续深入,益生菌、菌群代谢物与植物源活性物质,有望为沙门氏菌的风险管控提供新的干预思路。
肠道菌群检测可解析肠道群落组成与功能特征,辅助识别相关潜在风险、评估肠道生态状况,对有可疑暴露史或反复检出相关致病菌的人群,可为个体化健康评估提供参考信息。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Chowdhury R, Bosire EM, Wolverton LR, Pavinski Bitar PD, Bell KE, Keresztes I, Chien RC, Altier C. Salmonella exploits a quorum-sensing family signal of the gut commensal Stenotrophomonas maltophilia to facilitate its colonization. Gut Microbes. 2026 Dec 31;18(1):2699455.
Almuzaini AM. Phytochemicals: potential alternative strategy to fight Salmonella enterica serovar Typhimurium. Front Vet Sci. 2023 May 16;10:1188752.
Wu Y, Liu Y, Ma J, Zhu S, Zhao X, Mou H, Ke X, Wu Z, Wang Y, Lin S, Qi W. A Microfluidic Biosensor for Quantitative Detection of Salmonella in Traditional Chinese Medicine. Biosensors (Basel). 2024 Dec 27;15(1):10.
Najim TM, Raad AS, Hussein AA, Hasan MS. Epidemiology and antibiotic resistance of Salmonella spp. in pet dogs: Implications for public health. Open Vet J. 2025 May;15(5):1998-2003.
Leleiwi I, Kokkinias K, Kim Y, Baniasad M, Shaffer M, Sabag-Daigle A, Daly RA, Flynn RM, Wysocki VH, Ahmer BMM, Borton MA, Wrighton KC. Gut microbiota carbon and sulfur metabolisms support Salmonella infections. ISME J. 2024 Jan 8;18(1):wrae187.
Song Y, Ni T, Zhao Y, Sang Z, Wang Q, Xia X, Liu C, Zhang W, Li S, Deng B, Wu P, Tan J, Li Z, Li W. Reactive oxygen species and reactive nitrogen species are double-edged swords in Salmonella infection. Arch Microbiol. 2025 Aug 6;207(9):215.
Soni, S., Gambhir, L., Sharma, G. et al. Unraveling the treasure trove of phytochemicals in mitigating the Salmonella enterica infection. Folia Microbiol 70, 1–17 (2025).
He X, Guo J, Bai Y, Sun H, Yang J. Salmonella-based therapeutic strategies: improving tumor microenvironment and bringing new hope for cancer immunotherapy. Med Oncol. 2024 Dec 12;42(1):27.
Ayuti SR, Khairullah AR, Al-Arif MA, Lamid M, Warsito SH, Moses IB, Hermawan IP, Silaen OSM, Lokapirnasari WP, Aryaloka S, Ferasyi TR, Hasib A, Delima M. Tackling salmonellosis: A comprehensive exploration of risks factors, impacts, and solutions. Open Vet J. 2024 Jun;14(6):1313-1329.