-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
医生门诊大概多数都遇到过这类病人——愁眉不展、全身都在痛、精神萎靡,可检测化验指标一通下来却全是阴性结果。面对这种情况,医生脑子里闪过的:是癔症还是类风湿关节炎?
其实,临床上其实还有一类并非少见的、却很容易被忽视的慢性疼痛疾病——纤维肌痛综合征(FMS)。
纤维肌痛以全身广泛性疼痛以及明显躯体不适为主要特征,常伴有疲劳、睡眠障碍、晨僵以及抑郁、焦虑等精神症状。因其常与其他疾病共病,藏匿在常见病下,很难被发现。
传统上认为这是一种非炎症性疾病,但随着研究不断深入,人们发现其发生发展并不只是肌肉的问题,中枢敏化、低度炎症、氧化应激、自主神经系统功能紊乱、神经炎症、肠道菌群改变都参与该病的发病机制。
这些新的认识也让饮食和营养干预逐渐受到关注。饮食可能通过影响炎症反应、氧化应激、代谢状态、肠道菌群等多个环节,对纤维肌痛相关症状产生一定影响。因此,抗炎饮食以及部分营养补充剂,也开始被视为综合管理中的潜在辅助策略。
关于纤维肌痛综合征,中华医学会以及北京大学风湿免疫研究所都专门写过专业的科普,此前谷禾写过慢性疼痛的发病风险因素,病因和主要致病机制等。
久治不愈的疼痛,基于肠道菌群调节的科学依据与临床前景
本文将进一步讨论纤维肌痛综合征发病的一些最新研究机制,以及我们日常饮食方式中的饮食方式和生活方式,包括地中海饮食、植物性饮食、低 FODMAP 饮食、排除性饮食、Omega-3 脂肪酸和抗氧化剂等补充剂和运动、心理干预等对纤维肌痛综合征症状改善或预防作用。
注:本文纳入的文献,包括纤维肌痛饮食与营养干预相关的原创研究、随机及非随机临床试验、观察性研究、系统评价、Meta 分析及叙述性综述,希望在现有研究基础上,对相关干预方式的潜在作用进行较为全面、客观的梳理和综合分析。
纤维肌痛症是一种慢性疼痛疾病,其全球患病率在 0.2%~6.6%之间不等。
纤维肌痛并不罕见
综合各项研究数据后估计其患病率约为 2%-3%。该病在女性中的发病率高于男性,尤其在 20-55 岁的人群中更为常见。
不同地理区域和临床环境下的患病率也存在差异,城市人口中的发病率通常更高。研究报道在印度城市人口和农村人口的患病率分别为每 1000 人中有 41.2 例和 32.4 例。
纤维肌痛的三类典型表现
广泛存在的疼痛
这是最主要的症状,也是所有纤维肌痛的患者都存在的症状。疼痛遍及全身各处,呈弥漫性分布,疼痛的性质也多种多样,可以表现为钝痛、刺痛、麻木痛、刀割痛、放射痛等。
编辑
这种疼痛并不是患者想象出来的。过去,由于纤维肌痛患者往往主诉较多,又常伴随焦虑、抑郁等情绪问题,一些患者的疼痛曾经被医生误认为是精神上的臆想。
但目前普遍认为,纤维肌痛患者所感受到的疼痛是真实存在的,而且部分患者疼痛程度较重,即使经过休息也不一定能够明显缓解。此外,部分患者还会表现出明显的压痛或痛觉敏感。
编辑
疲劳、睡眠和认知问题常常同时出现
很多患者还会长期受到疲劳和睡眠障碍的困扰。这里的疲劳不是忙碌之后正常的疲劳,而是一种持续性的慢性疲倦感,即使经过休息或睡眠,也还是疲劳。
睡眠问题又会进一步影响白天的精神状态,久而久之还可能伴随焦虑、易怒、情绪低落等问题,并影响工作、学习以及日常生活,影响到待人处事的方式,恶化人际关系。
与此同时,一部分患者还会出现认知功能方面的变化,例如注意力难以集中、记忆力下降、思维变慢等。
其中,一种较有代表性的认知问题被称为“纤维雾”。
注:纤维雾(Fibro Fog),或纤维肌痛脑雾,患者常形容自己类似于在雾中思考,思维不清晰,很难理解周围的环境,很难弄清楚别人想说什么,也很难集中注意力。研究表明, 50%~80%的纤维肌痛患者存在这类认知问题。
可能伴随其他多种不适
有些患者会感觉关节肿胀、疼痛或身体僵硬,但检查时又未必能够发现与症状相对应的明显异常;部分患者还可能伴随头痛、胃肠道不适,以及肠易激综合征、膀胱刺激相关症状等。
这些症状的严重程度也并非始终保持不变。不同患者之间存在明显差异,同一个患者在不同时间的症状也可能有所波动。天气变化、过度劳累以及精神紧张等因素,都可能使症状进一步加重。
总而言之,纤维肌痛的症状比较主观,缺乏特异性,辅助检查的结果多为正常,压痛点的存在可以为临床实践提供可靠的证据。
为什么纤维肌痛容易被忽视?
纤维肌痛的一个典型特点是:患者的不适明显,但常规检查却找不到与症状相对应的异常。
患者可能长期存在全身疼痛、疲劳、睡眠障碍、认知问题等多种不适,但这些症状本身缺乏特异性,在其他疾病中也可能出现。与此同时,抽血、影像学等常规检查结果又常常没有明显异常,这使得纤维肌痛很容易与类风湿关节炎、甲状腺疾病以及其他可能引起慢性疼痛和疲劳的疾病混淆。
也正因为如此,一些患者在得到明确诊断之前,往往需要辗转多个科室、接受多项检查。尽管近年来人们对纤维肌痛的认识不断提高,但漏诊和延迟诊断的情况仍然存在,其实际造成的疾病负担也可能因此被低估。
纤维肌痛的风险因素
目前,纤维肌痛的确切病因仍未完全明确,也很难用某一个单独因素解释疾病的发生。
纤维肌痛在女性中更为常见,也可以发生于任何年龄,但成年人及中年人群更常见。
纤维肌痛具有一定的家族聚集性。近亲中有纤维肌痛患者的人,其他家庭成员发生该病的风险可能相对更高。
类风湿关节炎、系统性红斑狼疮以及其他慢性疼痛性疾病患者,发生纤维肌痛的风险可能更高。
长期睡眠不足、睡眠质量差或睡眠节律紊乱,与纤维肌痛发生风险升高有关,也可能进一步增加疼痛敏感性和疲劳感。
超重、肥胖以及较低的身体活动水平都与纤维肌痛风险增加存在一定关联。肥胖还可能通过低度炎症和代谢异常加重疼痛。
长期精神压力、重大生活事件、童年不良经历或创伤后应激障碍(PTSD)等,可能增加纤维肌痛发生或症状加重的可能性。
部分患者在感染、严重外伤、手术等事件后出现纤维肌痛症状。
近年来研究发现,纤维肌痛患者可能存在肠道菌群及其代谢改变。菌群失衡可能通过脑-肠轴、免疫和代谢等途径影响疼痛敏感性。
这一潜在机制将在本文后面的章节中进一步详细介绍。
诊断关键:排除+症状匹配
目前没有特异性的检查(如抽血、拍片)能直接确诊纤维肌痛综合征,医生主要通过以下两点判断:
症状是否符合
满足“全身广泛性疼痛≥3个月”,且按压18个典型“压痛点”中至少11个有明显疼痛(部分最新标准已简化,更关注疼痛分布和伴随症状)。
注:早期的纤维肌痛诊断标准曾十分强调压痛点;而近年来的诊断标准已经逐渐弱化对固定压痛点数量的依赖,更加重视疼痛分布及伴随症状的整体评估。
排除其他疾病
需通过检查(如血常规、风湿因子、肌酶、X线等)排除类风湿关节炎、强直性脊柱炎、甲状腺疾病、贫血等可能引起类似疼痛的疾病。
① 腰部上方和下方的双侧疼痛,以集中疼痛为特征;
② 持续至少3个月的慢性全身疼痛,以18个特定身体部位中至少11个部位的触诊疼痛为特征。
除表现为全身广泛性疼痛外,还可伴发肠易激综合征、间质性膀胱炎、颞下颌关节功能障碍等相关症状。
随着研究不断深入,人们发现,纤维肌痛可能并不只是肌肉或关节本身的问题,中枢疼痛处理、神经免疫反应、氧化应激、自主神经功能以及肠道微生物群等多个环节都可能参与其中。
那么,这些变化究竟如何导致持续性的疼痛、疲劳和其他症状?饮食又可能通过哪些环节产生影响?这就需要进一步从纤维肌痛的病理生理机制说起。
中枢敏化
中枢敏感化被认为是纤维肌痛症背后的核心机制,其表现为中枢神经系统的兴奋性增加,从而导致疼痛抑制功能受损。理解这些核心机制,是后续探讨肠道菌群如何影响疼痛的关键。
疼痛信号为什么会被放大?
中枢敏化一旦形成,身体就像一个报警器,灵敏度调到很高,一点点刺激就痛。
编辑
部分纤维疼痛患者还有同一个隐藏问题:感觉能力下降,本体觉被抑制。
本体觉,就是你对身体位置、肌肉状态的内在感知。长期中枢敏化,会一步步让人摸不清自己的身体、感知变得破碎麻木、越来越难区分“紧张”和“疼痛”。
最终形成一个死循环:
编辑
这一切,都和一个关键脑区密切相关——中脑。中脑是:疼痛中枢、泌尿中枢、焦虑与情绪中枢、多巴胺分泌中枢、高级交感神经中枢。
中脑长期过度兴奋,后果是:
谷氨酸、NMDA受体与疼痛敏感性
在分子层面,中枢敏化与兴奋性和抑制性神经信号之间的平衡改变有关,其中谷氨酸-NMDA受体通路受到较多关注。
谷氨酸是中枢神经系统重要的兴奋性神经递质。当谷氨酸能神经传递持续增强时,NMDA受体活性增加,可促进神经元兴奋和疼痛信号传递,使神经系统更容易对后续刺激产生较强反应。关于谷氨酸,谷禾之前的文章有详细阐述:
兴奋神经递质——谷氨酸与大脑健康
那么意味着如果我们可以监测到神经递质,例如抑制性神经递质GABA或兴奋神经递质谷氨酸等的异常,或通过干预神经递质的平衡状态,来缓解中枢敏化及其敏化带来的一系列慢性疼痛和纤维肌痛。
编辑
<来源:谷禾肠道菌群检测数据库>
纤维肌痛患者脑脊液和脑组织中的谷氨酸浓度升高,加上 P 物质水平上升以及血脑屏障通透性改变,都可能加剧疼痛敏感性并导致中枢疼痛的放大效应。
注:P物质(Substance P)是一种神经肽,主要参与疼痛信号传递和炎症反应。
饮食可能从哪里介入?
膳食因素也可能通过多酚、Omega-3 脂肪酸及其他生物活性营养素所具有的抗炎和抗氧化作用来影响这些机制。
例如镁可以通过调节 NMDA 受体活性来降低神经细胞的过度兴奋,而Omega-3 脂肪酸则可通过改善神经元膜功能及谷氨酸的转运来维持谷氨酸能系统的稳态。
尽管直接的临床证据仍较为有限,但这些机制共同可能有助于调控纤维肌痛中的神经炎症反应与中枢敏感化现象。
神经炎症
神经炎症已被认为是纤维肌痛病理生理过程中重要的致病因素,神经炎症也是多种神经系统疾病的重要发病机制之一,越来越多的证据表明中枢神经系统内的神经免疫反应存在紊乱。
神经炎症:神经系统疾病的共同病理基础与治疗新方向
2025年发表在《Science》杂志发表了一篇由首都医科大学施福东教授与加拿大卡尔加里大学 V. Wee Yong 教授共同撰写的综述,系统阐述了神经炎症在多发性硬化、卒中、阿尔茨海默病及帕金森病等疾病中的核心作用,并基于最新研究提出了靶向免疫调节的治疗策略。
编辑
神经炎症是如何发生的?
神经炎症的本质是中枢神经系统(CNS)内免疫细胞的异常激活与外周免疫细胞的浸润。当 CNS 遭遇损伤或蛋白异常聚集时,小胶质细胞与星形胶质细胞会被危险相关分子模式(DAMPs)激活,同时外周 T 细胞、单核细胞等通过血脑屏障侵入,形成 “炎症级联反应”。
尽管这一过程初始旨在清除病原体或修复损伤,但其过度激活会释放蛋白酶、细胞因子及活性氧(ROS),反向推动神经退行性变,形成难以阻断的恶性循环。
纤维肌痛中发现了哪些神经炎症信号?
正电子发射断层扫描研究显示,纤维肌痛患者存在胶质细胞活化现象,而 IL-8等趋化因子的水平升高则表明神经元与胶质细胞之间的相互作用增强,进而导致疼痛敏感度的上升。
纤维肌痛患者体内的活化小胶质细胞会释放多种促炎细胞因子,包括肿瘤坏死因子-α(TNF-α)和IL-1β,这些因子会显著加剧疼痛并促进神经炎症反应。
不过,PET 成像的结果应谨慎解读,因为它仅能提供小胶质细胞活化的间接证据,还需通过进一步研究加以验证。
此外,IL-1、IL-6 以及TNF-α等细胞因子已知会影响疼痛处理机制,可能在维持纤维肌痛患者的中枢敏感化状态及慢性疼痛方面发挥作用。
饮食可能从哪些环节介入?
现有证据表明,神经炎症在纤维肌痛的持续存在与病情进展中起着重要作用。因此,富含多酚、Omega-3 脂肪酸及其他植物来源抗氧化剂的抗炎饮食方案可能有助于调节这些神经炎症通路,从而减轻症状的严重程度。
氧化应激与线粒体功能障碍
氧化应激如何放大疼痛与疲劳?
谷禾以前写过大脑退行疾病的两个重要诱因:氧化应激和肠道失衡,今天不赘述了,感兴趣的可以点击了解下。
编辑
本文要讨论的纤维肌痛与氧化应激及线粒体功能障碍密切相关,后者表现为线粒体结构异常、酶活性降低以及 ATP 生成障碍。较高的活性氧水平及其造成的氧化损伤被认为会加剧纤维肌痛患者的疼痛、疲劳感,并促进炎症反应的发生。
抗氧化营养素的潜在作用
营养干预措施显示出缓解这些病理变化的潜力。维生素 C 和 E 等抗氧化剂以及多酚类物质可减少氧化损伤,而镁和辅酶 Q10则有助于维持线粒体功能。辅酶 Q10 在线粒体 ATP 合成中起着关键作用,同时也是一种强效的抗氧化剂,有望帮助减轻纤维肌痛症患者因氧化应激引起的症状。
此外,一些产品也开始逐渐进入医药市场以应对氧化应激,如阿魏酸 (FA),因为它具有抗氧化和抗炎特性。它通过增强 BDNF 和神经生长因子 (NGF) 以及一些具有抗炎特性的神经肽的产生来帮助神经干细胞增殖。
益生菌在抗氧化应激中的作用
2017 年的研究,益生菌如植物乳杆菌 NCIMB 8826、发酵乳杆菌 NCIMB 5221和动物双歧杆菌也能通过细菌 FA 酯酶大量产生阿魏酸。
由于其治疗效果,它在阿尔茨海默治疗中的应用越来越受到关注,用阿魏酸进行预处理已被证明可以减少 Aβ 原纤维并治疗阿尔茨海默小鼠的神经炎症。产生阿魏酸的益生菌通过清除 ROS 来抑制 β-淀粉样蛋白原纤维的形成和聚集。
自主神经系统功能紊乱
自主神经如何维持身体的平衡?
所谓自主神经功能失调或紊乱,并不是一个可以仅凭症状自行确诊的结论,更像是身体长期无法顺利在“工作”和“恢复”之间切换时,呈现出来的一组状态。
它提醒我们的不是某一处坏掉了,而是整个身体已经太久没有回到自己的节律里。
自主神经,是身体不用你指挥也会运行的系统
心脏跳动、呼吸调整、胃肠蠕动、血管收缩、体温变化和汗液分泌,大多不需要我们主动控制,是由自主神经系统默默协调。
它主要包括负责应对压力的交感神经,以及帮助身体休息、消化和恢复的副交感神经。
编辑
健康并不意味着永远放松,而是能够灵活切换,需要行动时调得起来,需要休息时退得下来。
当身体长期停留在“高警觉”状态
很多现代人的问题,恰恰不是交感神经偶尔兴奋,而是兴奋以后迟迟无法退出;副交感神经不是完全“失活”,而是越来越难获得足够的恢复时间。
自主神经紊乱的人,最典型的状态不是忙,而是停不下来。身体坐在沙发上,脑子还在处理工作;人已经躺到床上,下颌、肩膀和腹部依然暗暗用力;明明没有危险,心里却总有一种事情还没做完的紧迫感。
这种紧张持续久了,身体会把警觉误认为正常。
长期失衡会影响多个身体系统
呼吸逐渐停留在胸口,横膈膜活动减少,肩颈开始帮助吸气;胃肠蠕动受到影响,饭后更容易胀堵;盆底、腹股沟和下颌持续收紧,睡眠也会停留在较浅的层次。
很多人以为自己只是想得太多,实际上,头脑的忙乱往往只是身体高警觉的一个表现。
真正让人疲惫的,不只是白天做了多少事情,而是身体到了晚上仍然没有收到“今天已经结束”的信号。
纤维肌痛中的自主神经失衡
研究文献支持自主神经功能紊乱日益被视作纤维肌痛的重要特征。针对心率变异性所开展的研究表明,患者的交感神经系统活动增强,而副交感(迷走)神经系统活动则减弱(和上面的自主神经系统功能紊乱类似),这提示纤维肌痛患者存在自主神经调节异常。
心率变异性是一种用于无创评估自主神经系统功能的指标,已被广泛用于检测纤维肌痛患者的自主神经功能紊乱情况。
持续的交感-迷走神经失衡可能加剧纤维肌痛患者常见的疼痛、疲劳、睡眠障碍以及应激反应异常等问题。
肠道微生物群的改变
肠道菌群在与中枢神经系统功能及相关疾病的复杂联系,包括纤维肌痛,正通过“微生物群-脑-肠轴”(Microbiota-Gut-Brain Axis, MGBA)这一概念得到系统性的阐释。
纤维肌痛患者肠道微生物群变化
编辑
DOI: 10.1111/1756-185X.15021
脑-肠-菌轴构成了肠道微生物影响宿主疼痛感知和调控的主要生理基础。其主要通讯途径包括:
肠道菌群如何通过“脑-肠轴”影响纤维肌痛?
肠道菌群不仅帮助消化食物,也会通过“微生物群-脑-肠轴”与大脑持续交流。这一系统像一张双向通讯网,将肠道、免疫系统、内分泌系统和神经系统连接起来。因此,肠道菌群失衡可能不仅引起腹胀、排便异常,还可能参与焦虑、睡眠问题以及纤维疼痛的发生和维持。
编辑
doi: 10.13107/jocr.2026.v16.i04.7166
这种影响主要通过以下四条途径实现。
神经通路:迷走神经是肠道与大脑的“信息高速路”
迷走神经是人体重要的脑神经,连接脑干与胃肠道、心脏等器官。它的多数神经纤维负责把肠道信息传给大脑,因此可被看作肠道向大脑汇报情况的主要通道。
肠道菌群虽然不会直接接触大脑,但其代谢产物能刺激肠壁中的肠内分泌细胞。这些细胞会释放5-羟色胺、胰高血糖素样肽-1(GLP-1)、胆囊收缩素等信号分子,进一步激活迷走神经末梢。
例如,膳食纤维经菌群发酵后产生的短链脂肪酸,尤其是丁酸,可促进肠道释放5-羟色胺。该信号经迷走神经传至脑干的孤束核,再影响杏仁核、丘脑、岛叶和前扣带皮层等参与疼痛、情绪和内脏感觉的脑区。
就是说,肠道状态可影响人对疼痛的敏感程度,以及疼痛伴随的焦虑、恐惧和不适体验。
编辑
动物研究发现,部分益生菌能够减轻焦虑、抑郁样行为和内脏痛;而切断迷走神经后,这些作用会明显减弱甚至消失,提示迷走神经是菌群发挥部分神经调节作用的重要桥梁。
同时,这条通路也是双向的:压力、焦虑和睡眠不足等大脑信号,也可通过迷走神经影响肠道蠕动、消化液分泌、黏液层和肠道屏障,进而改变菌群生存环境,形成“情绪—肠道—疼痛”的循环。
免疫通路:菌群失调可引发低度炎症,放大疼痛
肠道是人体最大的免疫器官之一。正常菌群能帮助免疫系统学会区分“朋友”和“敌人”,既抵御病原体,又避免炎症反应过度。
编辑
doi.org/10.1111/1756-185X.15021
有些菌群及其代谢物能促进调节性T细胞(Treg)形成。Treg可产生IL-10等抗炎因子,相当于免疫系统的“刹车”,有助于限制炎症和疼痛。相反,某些菌群变化可能促进Th17细胞及IL-17等促炎通路活跃,增加炎症性疾病和疼痛的风险。
当菌群多样性下降、有益菌减少、潜在有害菌增加时,肠道屏障可能受损,出现俗称的“肠漏”。此时,细菌成分如脂多糖(LPS)更容易进入循环,激活免疫细胞,促使TNF-α、IL-1β、IL-6等炎症因子升高。
这些炎症因子会降低外周痛觉神经的激活阈值,使原本不太强的刺激也更容易感到疼痛,称为外周敏化。它们还可能影响脊髓和大脑中的小胶质细胞、星形胶质细胞,促进神经炎症和中枢敏化。中枢敏化会使疼痛持续更久、范围更广,也更难缓解,是许多慢性疼痛的重要机制。
内分泌通路:肠道菌群参与应激系统调节
下丘脑—垂体—肾上腺轴(HPA轴)是人体应对压力的核心系统,可调控皮质醇等应激激素。短期应激有助于应对危险,但长期压力会扰乱激素节律,增加焦虑、抑郁、睡眠障碍和慢性疼痛的风险。
研究发现,缺少正常肠道菌群的动物对应激的HPA轴反应往往过强;在早期补充特定菌群后,这种异常可得到一定改善。菌群代谢物、炎症反应及肠道屏障状态,都可能影响HPA轴活性。
因此,压力可通过神经和激素改变菌群;而菌群失调又可能通过炎症和代谢信号加重应激反应。长期处于这种循环中,机体更容易形成疼痛敏感状态。
代谢通路:菌群产生的小分子可影响免疫与神经功能
肠道菌群可把膳食纤维、胆汁酸和色氨酸等转化为具有生物活性的物质。
短链脂肪酸包括乙酸、丙酸和丁酸。它们既是肠道上皮细胞的重要能量来源,也能增强肠屏障、减少炎症、促进Treg细胞形成。丁酸还可能影响神经递质平衡、神经营养因子及小胶质细胞活性。动物实验提示,补充丁酸盐或增加膳食纤维,可能减轻炎症性疼痛和部分神经病理性疼痛。
编辑
次级胆汁酸由肠道菌群参与生成,可作用于TGR5等受体。相关信号与免疫调节、肠道功能和内脏痛调控有关。
菌群代谢的色氨酸代谢物也十分重要。菌群可影响5-羟色胺、犬尿氨酸和吲哚类物质的生成。这些分子与情绪、睡眠、免疫和疼痛均有关。例如,某些代谢失衡可能增强NMDA受体相关的兴奋性信号,促进神经炎症和疼痛敏化。
肠道菌群可通过迷走神经传递肠道信号,通过免疫系统调节炎症,通过HPA轴影响应激反应,并借助多种代谢物作用于肠道、神经和免疫细胞。菌群失调、肠屏障受损和慢性低度炎症,可能共同推动疼痛从短暂的保护性反应转变为持续性纤维肌痛。
– 尽管目前有些证据强度仍较有限 –
地中海饮食
地中海饮食以大量摄入水果、蔬菜、全谷物、豆类、坚果、橄榄油和鱼类为特点,其抗炎作用早已得到广泛认可。
遵循地中海饮食可通过减少促炎细胞因子的产生、改善免疫与代谢功能以及增强抗氧化能力来降低炎症水平。
橄榄油富含单不饱和脂肪酸和多酚,再加上鱼类中的ω-3 脂肪酸,能够通过调节炎症信号通路并减轻氧化应激,进一步发挥这些作用。
一项前瞻性、随机化、双盲、安慰剂对照的临床试验,共有 250 名女性参与,其中 206 名患有纤维肌痛,44 名为对照组。参与者在六个月的时间里分别摄入添加了特级初榨橄榄油的地中海式饮食或精炼橄榄油(作为安慰剂)。
结果表明,特定分类群随着特级初榨橄榄油的增加而显著增加,包括脆弱拟杆菌、Anaerotruncus colihominis;产丁酸菌如普拉梭菌、Roseburia intestinalis、Agathobacter。摄入特级初榨橄榄油可能有助于促进抗炎和代谢性细菌的生长。
对每组在各个时间点的治疗与安慰剂组的差异分析,以基线值为参考点
编辑
doi.org/10.3390/life16060894
这些特点与纤维肌痛的部分病理生理机制具有一定联系。纤维肌痛可能涉及低度炎症、氧化应激、免疫调节异常以及肠道菌群改变,因此,提高地中海饮食的依从性和整体饮食质量,可能有助于改善部分患者的症状和生活质量。
同时,地中海饮食富含植物性食物和膳食纤维,也可能通过影响肠道菌群及其代谢产物,为纤维肌痛的饮食干预提供另一条潜在途径。
植物性饮食
以植物性食物为主的饮食模式,包括素食和纯素食,富含纤维、抗氧化剂以及具有明确抗炎和抗氧化作用的植物化学物质。
其较高的纤维含量有助于提升肠道菌群的多样性并促进有益微生物代谢产物的生成,而较低的饱和脂肪含量则有助于减少全身性炎症。
植物营养素在调节纤维肌痛症相关病理机制中的作用
编辑
doi.org/10.3390/medicina61122211
此外,维生素 C 和 E、类胡萝卜素以及多酚等抗氧化剂能够减轻氧化应激,从而帮助纤维肌痛症患者改善代谢与免疫功能平衡。
在一项纳入 18 名纤维肌痛患者的非随机对照试验中,为期三个月的纯素食饮食干预显著改善了患者的疼痛程度、关节僵硬感、睡眠质量以及整体健康状况。
同样,一项针对纤维肌痛患者饮食干预措施的系统性综述也涵盖了多项临床研究,结果表明包括素食在内的多种饮食方式都能改善患者的疼痛、疲劳感、生活质量和心理状态等指标,但该类研究的整体证据质量被认为较低。
总体而言,植物性饮食干预似乎对纤维肌痛的治疗具有潜在益处,不过仍需更多设计严谨的研究来明确其长期疗效及作用机制。
低 FODMAP(可发酵寡糖、双糖、单糖及多元醇)饮食
低 FODMAP 饮食最初主要用于改善肠易激综合征相关症状,其核心是减少一类在小肠中吸收不完全、容易在肠道内发酵的短链碳水化合物。由于不少纤维肌痛患者同时存在腹胀、腹痛、排便异常等胃肠道问题,因此,这种饮食方式也逐渐受到纤维肌痛研究领域的关注。
目前认为,减少 FODMAP 的摄入可能首先改善患者的胃肠道症状,并通过肠道-大脑轴等途径间接影响疼痛、疲劳和整体生活状态。
编辑
初步研究显示,低 FODMAP 饮食干预不仅可改善纤维肌痛患者的胃肠道症状,还能提升其日常功能表现与生活质量。不过,仍需更多大规模研究来验证这些发现。
需要注意的是,低 FODMAP 饮食并不适合长期严格限制。由于它会减少多类食物的摄入,如果缺乏专业指导,可能降低饮食多样性,并增加营养摄入不足的风险。
因此,更合理的做法是在专业营养人员指导下短期实施,在症状改善后逐步重新引入不同食物,观察哪些食物容易诱发不适,最终建立更适合个人的长期饮食模式。
排除饮食与食物敏感性
纤维肌痛患者常常报告在摄入某些食物后会出现症状加重的情况,这促使人们越来越关注在纤维肌痛管理中运用排除性饮食疗法。
观察性研究显示,许多纤维肌痛患者在确诊后会改变自己的饮食习惯,通常会避免食用麸质和乳糖等物质,以此来减轻症状的严重程度。
多项临床研究评估了针对纤维肌痛症患者的各种饮食干预措施,包括无麸质饮食和低 FODMAP 饮食。一项系统评价表明,这些饮食方案能够改善疼痛、疲劳及睡眠障碍等症状。
注:不同研究在干预方式、样本量和评价指标上差异较大,因此目前整体证据仍然有限。
这也意味着,排除性饮食并不适合所有纤维肌痛患者,更不建议在没有明确原因的情况下长期大量限制食物。哪些人更容易获益、应该排除哪些食物,以及长期效果如何,目前仍需要更多高质量研究进一步明确。
生酮饮食
生酮饮食通过大幅减少碳水化合物摄入,使机体进入营养性酮症状态,并产生包括β-羟基丁酸在内的多种酮体。除了作为替代能源外,β-羟基丁酸还可能参与炎症调节,例如抑制 NLRP3 炎性小体的活化,从而减少部分促炎细胞因子的释放。
编辑
目前,生酮饮食在纤维肌痛中的研究仍处于较早阶段。一项关于极低热量生酮饮食的初步研究发现,部分患者在干预后疾病严重程度、生活质量、情绪状态和睡眠质量有所改善,而且这些变化并不完全依赖于体重下降。这提示,酮症本身可能通过代谢或神经生物学途径影响纤维肌痛相关症状。
不过,现有研究数量较少、样本量有限,因此还不能据此认为生酮饮食已经被证实能够有效治疗纤维肌痛。此外,生酮饮食限制性较强,长期坚持并不容易。如果饮食搭配不合理,还可能降低食物多样性并增加部分营养素摄入不足的风险。
虽然现有短期研究提示其耐受性总体尚可,但在纤维肌痛患者中的长期安全性、实际效果以及可持续性仍需要更多高质量研究进一步明确。
多酚与抗氧化剂
浆果、茶、咖啡、巧克力、橄榄油等食物富含多酚类物质。
这类成分具有一定的抗氧化和抗炎作用,能够帮助清除过量活性氧、减轻氧化应激,而氧化应激正是纤维肌痛可能涉及的重要病理机制之一。
编辑
此外,多酚还可能通过影响小胶质细胞活性以及神经-免疫相互作用,参与神经炎症和疼痛敏感性的调节。因此,从机制上看,富含多酚的饮食可能对纤维肌痛患者具有一定的辅助价值。
除了从食物中获取多酚外,维生素 C、维生素 E 和 N-乙酰半胱氨酸等抗氧化成分也受到一定关注。这些物质能够参与机体抗氧化防御,例如帮助维持谷胱甘肽等抗氧化系统的功能,从而减轻活性氧积累带来的氧化损伤。
不过,这类干预的实际效果可能因人而异。多酚和其他抗氧化成分在人体内的吸收、生物利用度以及肠道菌群对其代谢方式都存在差异,再加上个体自身代谢状态不同,因此并不是所有患者都会获得相同的效果。
总体来看,多酚和抗氧化营养素更适合作为纤维肌痛综合管理中的辅助干预方向,其具体疗效仍需要更多高质量研究进一步明确。
辅酶 Q10(CoQ10)
辅酶 Q10 通过促进呼吸链中的电子传递,对线粒体的能量生成起着关键作用,进而有助于 ATP 的合成。此外,辅酶 Q10 还具有很强的抗氧化性能,能够帮助减少活性氧和氧化应激,而这两者都与纤维肌痛症的病理生理过程密切相关。
编辑
在一项随机双盲安慰剂对照试验中,每日摄入 300 毫克 CoQ10 并持续 40 天,可显著减轻与纤维肌痛相关的症状,包括疼痛、疲劳以及压痛点,同时还能改善线粒体功能相关指标及炎症生物标志物水平。
此前采用相同剂量进行长达三个月的临床观察也发现临床症状有所改善,这表明在短期至中期内使用 CoQ10 可能具有治疗作用。不过,最佳治疗时长以及长期疗效与安全性仍不确定,需通过更大规模的临床试验来进一步验证。
镁
镁补充剂在缓解纤维肌痛患者的疼痛与压力方面显示出潜在的益处。
一项随机双盲临床试验表明,服用镁补充剂后,患者的疼痛程度显著降低,压力水平也有所改善。不过,目前不同研究得到的结果并不完全一致,而且患者的基础镁水平、压力程度、镁制剂种类以及补充剂量等因素,都可能影响最终效果。
因此,现阶段更适合将镁视为纤维肌痛综合管理中的一种潜在辅助干预,其适用人群、最佳剂量以及不同镁制剂之间的差异,仍需要更多高质量研究进一步明确。
中草药
✦肝郁气滞证
【症状】
肌肉走窜胀痛,焦虑易怒,胸胁胀闷,寐差多梦,或脘闷嗳气,腹痛腹泻,不思饮食,疲乏无力,大便不调,或疼痛夜甚,胸胁刺痛,月经不调,经色紫暗有块;舌暗淡,舌苔白或腻,脉弦细。
◆【相关中药】
柴胡、黄芩、当归、白芍、川芎、白术、茯苓、半夏、防风、威灵仙、元胡、枳壳、陈皮、香附、元胡索、郁金、桂枝等,如兼气滞血瘀,则酌情增加桃仁、红花、川牛膝、乳香、没药等。
✦ 寒湿痹阻证
【症状】
肌肉酸胀、疼痛、僵硬,四肢重着无力,每遇寒冷痛,遇温痛减,舌淡苔白腻,脉沉细。
◆【相关中药】
附子、当归、黄芪、羌活、独活、防风、防己、细辛、桂枝、蜈蚣等。
✦ 痰热扰心证
【症状】
肌肉疼痛、拒按,惊悸不安,口苦心烦,头痛失眠,渴喜冷饮,性情急躁,反复梦魇,恶心纳呆,舌质红,苔黄腻,脉弦滑或弦滑数。
◆【相关中药】
半夏、竹茹、枳实、橘皮、茯苓、胆南星、黄芩、龙骨、牡蛎、穿山龙、忍冬藤、地龙等。
✦ 肝肾不足证
【症状】
肌肉酸痛、无力,腰膝疲软,劳累加重,筋缩,手足不遂;或畏寒肢冷,尿频清长,夜尿增多;或肢体麻木,失眠健忘,月经量少;舌淡苔白,脉沉或弱。
◆【相关中药】
熟地、山药、山茱萸、菟丝子、鹿角胶、杜伸、牛膝、党参、当归、川芎、茯苓、白芍、桂枝、秦艽、防风、细辛、木瓜、伸筋草、乌梢蛇等;偏于阴虚者,加龟板、枸杞子等;偏于阳虚者,加制附子、肉桂等。
以上资料来自《中国纤维肌痛综合征诊疗指南》DOI: 10.3760/cma.j.cn112138-20220602-00426. 注意中医用药需结合患者具体症状、证候及个体情况进行辨证施治,不建议自行照方服用,具体用药请咨询专业医师。
运 动
根据中华中医医学会2023年发出的纤维肌痛的诊疗指南,其特别强调推荐纤维肌痛患者应进行合理的运动锻炼,首选单一的运动形式,根据患者健康情况及个人喜好可采取有氧运动、力量训练、传统功法(太极拳、八段锦、六字诀、五禽戏)、瑜伽、拉伸运动、水中运动;疗程至少3个月。
编辑
此外,我们查询文件也发现一项纳入37篇文献的系统性综述显示,有氧运动、力量训练、功法、太极、瑜伽、拉伸运动、水中运动(如泳池训练、水疗法或水运动疗法)等单一运动形式可明显改善患者的躯体疼痛、认知障碍和生活质量,抑郁、焦虑和睡眠症状得到轻度和中度改善。此外,力量训练、功法、有氧运动均可缓解疲劳。
一项纳入13篇RCT的meta分析显示,与对照组相比,练习太极拳、八段锦、六字诀、五禽戏等功法(中位练习时长为60min/次,中位疗程为12周)4-7周可改善患者的疼痛、疲劳、抑郁、睡眠障碍和生活质量,对疼痛、生活质量和睡眠质量的疗效可维持至24-52周。
为保证疗效,推荐运动锻炼的疗程不应短于3个月。
运动+心里干预
该指南还推荐对有接受更多非药物疗法治疗意愿的纤维肌痛患者,在已有运动锻炼的基础上,可结合患者的具体情况制定个体化方案,选择再联合另一种运动疗法或心理治疗进行干预。
一项纳入21篇RCT(n=1253)的meta分析证实,联合运动(包括至少两种:有氧运动、力量训练和灵敏性训练)可以改善疼痛、僵硬症状以及FM相关生活质量、疲劳,并提高躯体功能,其疗效可持续6-52周,甚至更久。
一项纳入15篇研究(n=1751)的网状meta分析证实,运动联合心理治疗(至少一种运动疗法联合至少一种心理疗法)在改善疼痛和生活质量方面显示出了一定疗效。
编辑
对以疼痛为主要表现的FMS患者,推荐行针刺治疗,亦可尝试采用引导想象与催眠治疗、经颅直流电/磁刺激、按摩疗法进行治疗。
一项纳入12篇研究(n=824)的meta分析显示,接受针刺治疗(20-30min每次,共1-28次)的患者疼痛和生活质量的改善程度均显著好于对照组,且疗效可以维持至8-48周。
一项纳入7篇研究(n=387)的meta分析证实,接受为期4-26周(累计治疗时长2-8h)的引导想象/催眠干预的患者疼痛VAS改善≥50%达标率和心理压力的改善均显著好于对照组;此外,对疲劳、疼痛、睡眠障碍都有一定作用,且可以维持到治疗结束后12周。
睡眠管理与药物支持
睡眠管理:重建夜晚修复系统
失眠或非恢复性睡眠是FMS最常见的症状之一。规律的作息习惯、睡前避免强光刺激、减少咖啡因摄入是基础干预。
对于中重度睡眠障碍者,在医生指导下可使用助眠药物进行短期干预,以打破“疼痛-失眠-更痛”的恶性循环。
药物治疗:针对疼痛机制的精准干预
虽然纤维肌痛患者不推荐长期依赖止痛药,但特定药物能有效调节中枢神经系统的异常状态:
需要强调的是,药物治疗应个体化,用药前需咨询医师。
纤维肌痛是一种多维度、多系统交织的、需要长期管理的慢性疼痛疾病,既不能简单归为“心理问题”,也不能视为“肌肉病”。它是一种中枢痛觉处理异常导致的“功能性疾病”,需要全社会更多理解与支持。
其干预通常需要饮食、运动、睡眠管理以及生活方式调整、药物等多种方式共同参与。相比之下,饮食干预是一种风险相对较低的策略。改善整体饮食质量、减少促炎饮食因素,并根据个体情况选择合适的营养干预,可能有助于缓解纤维肌痛患者部分症状并改善生活质量。
纤维肌痛并不是“想太多”或“忍一忍就会过去”的问题。持续的疼痛、疲劳、睡眠障碍和认知困扰都是真实存在的。患者及家属需要建立正确的疾病认知,并在专业医生指导下,根据自身症状制定个体化的长期管理方案。
未来,随着对“肠道菌群-免疫-神经系统”相互作用认识的不断深入,肠道菌群检测以及基于菌群特征的个体化饮食干预,可能为纤维肌痛的精准管理提供新的思路。
如果你身边有人常说
“我浑身都疼”“真的好累”
别急着说TA“太敏感”
理解、共情、科学治疗
才是我们真正该给的回应
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献:
中华医学会风湿病学分会。纤维肌痛综合症诊断和治疗指南。中华风湿病学杂志,2011,15(8):559-561。
Wolfe F,Clauw DJ,Fitzcharles MA等。用于临床和流行病学研究的纤维肌痛标准和严重程度量表:ACR纤维肌痛初步诊断标准的修改。风湿病杂志,2011,38(6):1113-1122。
Priya D, Shetty P, Shetty G B (July 10, 2026) Anti-inflammatory Diets for Chronic Pain Disorders With a Focus on Fibromyalgia: A Narrative Review. Cureus 18(7): e112395.
Bair MJ, Krebs EE (2020) Fibromyalgia. Ann Intern Med 172:ITC33.
Sarzi-Puttini P, Giorgi V, Marotto D, Atzeni F (2020) Fibromyalgia: an update on clinical characteristics, aetiopathogenesis and treatment. Nat Rev Rheumatol 16:645–660.
中华中医药学会风湿病分会;海峡两岸医药卫生交流协会风湿免疫病学专业委员会纤维肌痛综合征中西医研究学组;首都中西医结合风湿免疫病研究所 (2023) 中国纤维肌痛综合征诊疗指南. 中华内科杂志 62:129–146.
(2020) 纤维肌痛症发病机制的研究进展. 同济大学学报(医学版) 518–522
Macfarlane GJ, Kronisch C, Dean LE, et al (2017) EULAR revised recommendations for the management of fibromyalgia. Ann Rheum Dis 76:318–328.
Bhargava J, Goldin J: Fibromyalgia. StatPearls [Internet]. StatPearls Publishing, Treasure Island (FL); 2025.
Marques AP, Santo AS, Berssaneti AA, Matsutani LA, Yuan SL: Prevalence of fibromyalgia: literature review update. Rev Bras Reumatol Engl Ed. 2017, 57:356-63.
Misra DP, Sharma A, Dharmanand BG, Chandrashekara S: The epidemiology of rheumatic diseases in India. Indian J Rheumatol. 2024, 19:54-61.
Belviranlı M, Okudan N, Sezer T. Coenzyme Q10 improves redox homeostasis, mitochondrial biogenesis, and irisin signaling in fast- and slow-twitch muscle fibers in a reserpine-induced fibromyalgia-like myalgia model. Life Sci. 2026 Jun 1;394:124366.
Palma-Ordóñez JF, Moreno-Fernández AM, Ramírez-Tejero JA, Durán-González E, Martínez-Lara A, Cotán D. Implication of intestinal microbiota in the etiopathogenesis of fibromyalgia: A systematic review. Int J Rheum Dis. 2024 Jan;27(1):e15021.
García-Domínguez M: A comprehensive analysis of fibromyalgia and the role of the endogenous opioid system. Biomedicines. 2025, 13:10165.

谷禾健康
抑郁症仍然是最普遍的精神疾病之一,许多患者对可用的治疗方法反应不足。慢性或早期生活压力是抑郁症的主要风险因素之一。
研究发现清楚地表明,抑郁症是一种复杂的精神疾病,与压力适应不良有着内在的联系,这会导致下丘脑-垂体-肾上腺轴(HPA轴)和免疫系统失调。在过去的几年里,很明显,这种改变的压力和炎症反应会聚集在大脑功能上,从而破坏正常的神经免疫稳态。
与此同时,人们发现肠道微生物群是压力和炎症的关键调节因子,因此它在抑郁症中的作用机理和干预调节机制也越来越清晰。
这三位一体的风险因素如何相互作用以维持大脑和身体的生理稳态尚不完全清楚。
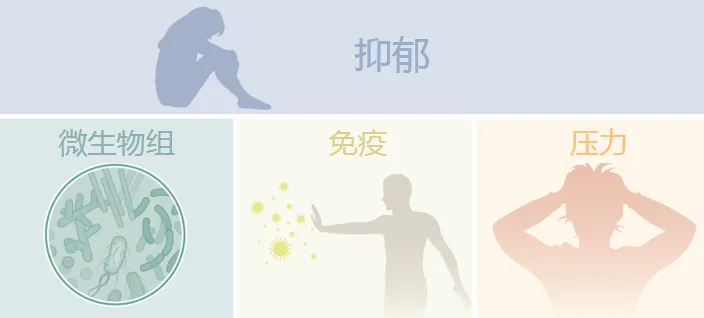
在本文,我们整合了动物和人类研究中关于抑郁症病因和进展中的这三个因素的现有数据。还关注这种微生物群免疫应激基质可能影响集中介导事件的过程,以及可能的治疗干预措施以纠正这三位一体的失衡。
关键词
重度抑郁症(MDD)是一种复杂的使人衰弱的精神疾病,估计约占全球残疾的10%;根据世界卫生组织的数据,它是目前全球残疾的主要原因。
典型症状包括情绪低落、焦虑、快感缺乏和认知障碍,这些症状会严重影响患者的生活质量。尽管在过去几十年中对了解这种疾病的病因、进展和生物学进行了大量投资,但其分子和细胞基础仍然不明确。
目前,人们越来越认准这样一个事实,即抑郁症并不完全影响大脑功能,而是表现为影响几乎所有主要身体系统的全身疾病。
抗抑郁药治疗通常涉及操纵5-羟色胺能和去甲肾上腺素能系统。然而,这些抗抑郁药是次优的,因为它们起效缓慢且有不良副作用,有时会降低患者的依从性,从而限制其疗效。
此外,据估计,大约1/3的MDD患者在一线抗抑郁治疗后进入缓解期。对一种或多种适当的抗抑郁药治疗没有反应,以及适当的治疗持续时间和剂量,被定义为难治性抑郁症,这大大增加了MDD的负担。
认知行为疗法是一种越来越突出的干预措施,它基于这样一个断言,即适应不良的信息处理和不准确的信念为重复的消极思考奠定了基础,在抑郁症中起着至关重要的作用,当受到挑战时,可以导致急性痛苦的减少或防止未来的症状复发。这种策略在临床上被广泛使用,并且已被证明可以在焦虑和精神病中产生神经可塑性和大脑连接的调节。
小编也不太懂认知行为疗法,去专门了解查阅了,以下是对认知行为疗法的具体解释:
认知行为疗法
CBT, Cognitive Behavioral Therapy
基本概念:
认知行为疗法是一种心理治疗方法,它强调我们的想法(认知)如何影响我们的感受和行为。简单来说,就像是帮助人们“重新编程”自己的思维方式。
工作原理:
识别问题:帮助人们发现自己的消极想法模式
挑战想法:学会质疑这些消极想法是否合理
改变行为:通过改变思维方式来改变行为反应
具体举例:
假设遇到这样一个场景:
事件:在公众场合演讲
消极想法:”我一定会搞砸的,大家都会笑话我”
情绪反应:焦虑、恐惧
认知行为疗法介入:帮助分析这种想法是否合理,提供更平衡的思考方式
应用领域:
抑郁症
焦虑障碍
恐慌障碍
社交恐惧
强迫症
创伤后应激障碍
治疗过程:
识别触发因素:找出引起负面情绪的情境
记录想法:记录当时的想法和感受
分析证据:检验这些想法的真实性
寻找替代:学习更健康的思维方式
实践新技能:在日常生活中应用新的认知模式
优势:
实用性强:提供具体的问题解决工具
时间较短:通常12-20次治疗即可见效
效果持久:学到的技能可以终身使用
科学依据:有大量研究支持其有效性
神经可塑性影响:
这种疗法能够:
改变大脑结构
增强神经元之间的连接
促进大脑的适应性变化
帮助形成新的神经通路
通俗来说,认知行为疗法就像是给我们的思维方式做一次“软件更新”,帮助我们用更健康、更理性的方式来看待问题和应对压力。它不仅能帮助我们度过当前的困境,还能预防未来可能出现的问题。
这种疗法特别适合那些经常陷入负面思维循环的人、容易焦虑或抑郁的人、面对压力时感到无助的人、希望提高情绪管理能力的人。需要注意的是,虽然认知行为疗法效果显著,但最好在专业心理治疗师的指导下进行,这样能够获得更好的治疗效果。
人们正在努力了解导致抑郁症的病因因素,希望它们可以被利用以获得治疗益处。
值得注意的三个因素是压力和下丘脑-垂体-肾上腺(HPA)轴、炎症和异常的免疫系统激活,以及最近的肠道微生物组。
抑郁症通常被称为压力相关疾病,而当前的教条是,由负面生活事件引起的压力,包括在早期生活中,会导致这种使人衰弱的疾病的发展、表现和神经发展。
◮ 负面事件引起的压力会促使疾病的发展
这种不利的生活事件被身体视为对其体内平衡的威胁,导致促进适应这些挑战的生理反应——即失落。然而,由于系统(包括HPA轴)的反复过度活动或不活动,这种调整可能对生物体造成巨大的生理成本,导致异体负荷增加,这已被概念化为代表反复压力暴露后身体磨损的生物学影响。
▸ HPA轴和压力
总的来说,压力可以被视为对刺激的必要进化反应,该刺激导致体内战斗或逃跑机制的激活,这对任何生物体的生存都是必不可少的。在哺乳动物中,这种反应是由HPA轴介导的,HPA轴是一种调节对压力的生理反应的负反馈系统。
◮ HPA轴调节对压力的生理反应
在几秒钟到几分钟内,HPA轴的激活使生物体能够通过优先考虑防御行为所必需的功能(如认知和能量供应)而不是与食物相关的生理功能(如消化)来应对威胁。
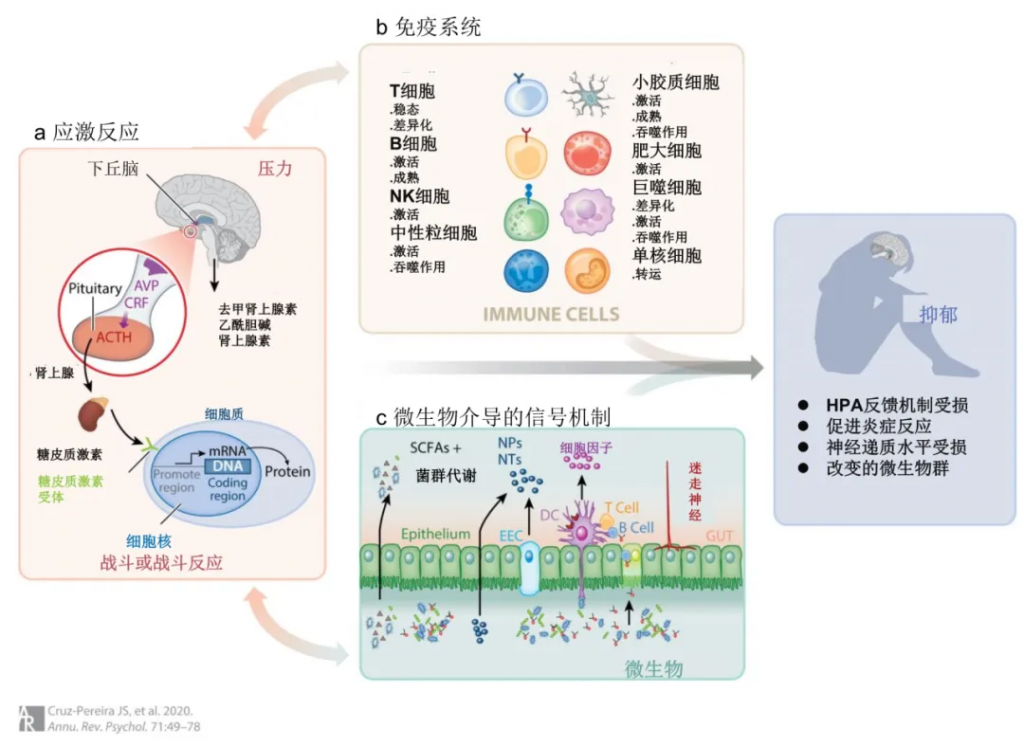
HPA 轴激活下丘脑室旁核(PVN)中的神经元分泌精氨酸加压素(AVP)和促肾上皮质激素释放因子(CRF),这反过来又促进垂体前叶促肾上腺皮质激素(ACTH)的产生和分泌。因此,ACTH诱导盐皮质激素和糖皮质激素(啮齿动物的皮质酮,人类的皮质醇)从肾上腺皮质产生和分泌到血液中。因此,高水平的皮质醇通过负反馈机制抑制ACTH和CRF的进一步释放,该机制通过皮质醇与垂体、PVN 和海马中的糖皮质激素受体(GR)结合来发挥作用。这导致系统急性激活后恢复到生理状态。
肾上腺皮质释放的糖皮质激素与GR相互作用,GRs不仅在HPA轴内表达,而且在整个身体中表达,包括肠道、免疫细胞和边缘大脑区域,如海马体。在这里,它们充当转录因子并塑造控制对压力的行为反应的神经回路的功能和结构组织。
◮ 抑郁症HPA轴负反馈回路受损
在抑郁症的情况下,HPA轴负反馈回路受损,导致糖皮质激素水平升高时间延长。有趣的是,抑郁症的一些症状,如绝望、睡眠中断以及食欲和体重的变化,都与HPA轴损伤有关,这部分解释了库欣病患者经常观察到的抑郁症状(一种以皮质醇分泌过多为特征的疾病)。
此外,慢性皮质酮治疗或慢性应激会诱导神经元海马萎缩。还值得注意的是,抑郁症会诱导HPA对急性压力的反应发生变化,这是通过特里尔社会压力测试测量的。
此外,临床神经影像学研究显示抑郁症中海马体的体积减少。因此,反复和严重的压力暴露,特别是在神经发育的敏感时期,会促进海马体的重新编程,诱导长期的改变,这些改变可能会决定,通常以性别特异性的方式对未来压力源的反应,可能有助于一些与压力相关的抑郁样表型。
大约一个世纪前,诺贝尔奖获得者 Julius Wagner-Jauregg 观察到,免疫系统的激活(由于接种疟疾)会影响精神功能。然而,心理神经免疫学领域花了几十年的时间才在抑郁症和心身医学的背景下出现。
研究指出,伴随人类感染发作和持续时间的各种心理参数的变化与抑郁症相似,这加强了该领域在抑郁症背景下的重要性。此外,人们越来越意识到患有自身免疫性疾病的个体表现出抑郁症的高发病率。
到1990年初期,很明显,免疫调节信号分子的过度分泌,特别是促炎细胞因子,可能在抑郁症的发生和维持中发挥作用。
▸ 促炎细胞因子与抑郁症
最初报道了白细胞介素6 (IL-6)、干扰素-γ(IFN-γ)和急性期蛋白的血浆浓度增加,现在已确定这些细胞因子和其他细胞因子,特别是肿瘤坏死因子(TNF),在抑郁症患者中升高。这种炎症表型也被认为是抑郁症治疗耐药的重要因素。
该理论促使研究人员研究抗炎化合物的抗抑郁作用,结果表明,TNF拮抗作用尤其能改善具有高基线炎症生物标志物的患者的抑郁症状。
此外,使用干扰素-α(IFN-α)等促炎剂治疗丙型肝炎病毒导致四分之一的患者出现抑郁症状。鉴于许多抗抑郁药物的抗炎作用,神经免疫机制现在被视为抑郁症状发展的核心。
具体的炎症因子在精神疾病中的详细特征可以参考文章:从肠道菌群到炎症因子:读懂疾病的预警信号
近年来,在整体大脑健康的背景下,人们对免疫运输到大脑的细胞机制越来越感兴趣。最初认为中枢神经系统(CNS)在某种程度上与外周免疫系统隔离。
然而,随着证据表明循环细胞因子确实可以影响大脑和行为,研究表明,尽管血脑屏障(BBB)严格调节免疫细胞迁移到中枢神经系统,但外周白细胞可以浸润脑脊髓液(CSF)、脑膜、脉络丛、血管周围间隙,并最终浸润脑实质。
随后,专门的先天免疫哨兵细胞——脉络丛巨噬细胞、血管周围巨噬细胞、肥大细胞、脑膜巨噬细胞和小胶质细胞(CNS常驻巨噬细胞)——在稳态条件下监视CNS,是潜在危险的第一反应者,检测病原体或组织损伤,并触发免疫反应。
此外,最近研究表明,CNS实际上通过淋巴引流系统直接连接到次级颈部淋巴结,该系统可以引起外周免疫反应。
▸ 在压力和抑郁中激活免疫系统
先天免疫系统是抵御感染和压力源的第一道防线,它从出生起就是固有的。就抑郁症的病理生理学而言,首要重要的是先天免疫系统通过产生细胞因子、激活补体级联反应以及随后通过抗原呈递激活适应性免疫系统来募集免疫细胞中的作用。
◮ 抑郁症患者中免疫相关分子浓度增加
研究人员报告称,MDD患者的循环免疫细胞(如单核细胞和粒细胞)水平升高。许多研究还表明,抑郁症患者血清中免疫信号分子(趋化因子和粘附分子,如人巨噬细胞趋化蛋白-1、可溶性细胞内粘附分子-1和E-选择素)以及急性期蛋白和促炎细胞因子,如 IL-6 或促炎因子(如前列腺素)的浓度增加,表明外周免疫系统与抑郁症有关。
同样,在暴露于社交失败压力的动物中,中性粒细胞和巨噬细胞的增加。此外,促炎细胞因子如IL-6 和TNF-α的缺失导致小鼠抑郁样行为的减少。
肥大细胞是参与免疫反应调节和体内平衡支持的先天免疫细胞,它们在过敏和癌症、HIV和结肠炎中起关键作用。此外,在大脑中发现了肥大细胞,它们已被证明在神经炎症、焦虑和塑造与性行为相关的神经发育通路中发挥作用。
它们还被证明通过依赖于色氨酸代谢的过程参与抑郁症。然而,需要进一步的研究来揭示外周先天免疫活性与抑郁症发展之间关系的潜在机制。
扩展阅读:
适应性免疫涉及免疫记忆现象,其中特定的淋巴细胞(T细胞或B细胞)特异性识别独特的决定因素(抗原),以便在第二次和随后与病原体相遇时产生更有效的反应。因此,它是身体对特定病原体做出反应的一种高度特异性的防御机制。
当研究显示抑郁症患者的循环辅助性T细胞(Th) (CD4+)、细胞毒性T细胞(CD8+)和B细胞数量增加时,最初提出了适应性免疫系统在抑郁症病因中的作用。
◮ 抑郁症个体中Th2和Th17等免疫细胞受损
最近报道了抑郁症个体中Th2和Th17细胞成熟受损、多种CD4+ T细胞库减少和B调节细胞减少。同样,动物模型的研究也表明,糖皮质激素和应激暴露会调节T细胞和B细胞反应。
鉴于这些过程中涉及的一些细胞因子与疾病行为的发展有关,在感染的情况下,这代表了一种重要的应对机制——这些分子的长期失衡可以解释恶心、食欲不振、睡眠障碍、疲劳和快感缺乏等症状的发展。
◮ CD8+细胞调节皮质甾酮和行为来响应压力
最近的一项研究报告称,尽管CD4+ T细胞似乎不直接参与对压力的反应,但 CD8+ 细胞毒性T细胞不仅通过调节皮质甾酮和行为反应来响应压力,而且还通过诱导促炎细胞因子的产生,可能通过诱导单核细胞和巨噬细胞来响应应激。
此外,有人提出,在依赖于记忆T细胞的过程中,对自身抗原的免疫记忆可能有助于压力应对机制的发展。
根据应激性损伤的性质和强度,循环中免疫调节剂的增加可能通过从BBB的外周毛细血管内皮细胞释放细胞因子,或通过迷走神经刺激响应外周炎症介质,间接触发神经炎症。
事实上,认知行为疗法已被证明可以有效调节促炎细胞因子(如IL-6和TNF-α)的水平,同时减轻抑郁症状,因此表明不平衡的促炎信号的减少与更好的临床结果有关。
▸ 炎症小体和抑郁症
人们对炎症小体在压力敏感和抑郁中的作用越来越感兴趣。
炎性小体是在骨髓谱系的细胞中产生的蛋白质复合物,作为对病原微生物或所谓的无菌压力源(如心理压力)的反应,产生的蛋白质复合物。
扩展阅读:
◮ 炎症小体会导致促炎细胞因子的激活
炎性小体的组装导致caspase-1的激活,而caspase-1又会裂解 IL-1β 和 IL-18 的前体形式,从而导致这些促炎细胞因子的激活并导致焦亡,这是一种不同于细胞凋亡的程序性细胞死亡形式。
在感染过程中,由特定先天免疫细胞强制执行的首要防御形式之一是在种系中编码的一组模式识别受体(PRR)的呈递,以识别入侵病原体表达的分子模式。这些可能在膜表面,例如Toll样受体(TLR),也可能在细胞质内部,例如Nod样受体(NLR)。
NLR 是胞质受体,能够识别非自身分子和相关细胞损伤,并由病原体相关分子模式(PAMP)和损伤相关分子模式(DAMP)触发。
◮ 抗抑郁治疗可以逆转炎症小体的过表达
NLRP3是NLR的一个亚群,是研究最多的参与 caspase-1 激活的炎性小体;它在小胶质细胞和未分化神经元的 CNS 中表达。啮齿动物研究表明,慢性应激导致 NLRP3 在小胶质细胞中过表达,这可以通过选择性血清素再摄取抑制剂(SSRI)抗抑郁药逆转。
在人类中,在未经治疗的 MDD 患者的外周血细胞中观察到 NLRP3 的过表达,同时血清 IL-1β 和 IL-18 水平升高,这被抗抑郁治疗逆转。因此,炎性小体有望成为炎症反应的关键调节剂,尽管这种复杂反应背后的机制仍相对未被探索。
▸ 神经免疫、压力和抑郁
◮ 小胶质细胞——脑部前哨免疫细胞
越来越多的证据表明,抑郁症有神经免疫基础。如前所述,小胶质细胞是关键的先天前哨免疫细胞,仅限于CNS,并通过运动突起监测环境以确定生理环境的变化。
除了作为对感染和损伤的反应者的关键作用外,小胶质细胞还参与神经发育和成年期不同阶段的神经元事件,包括突触重塑以塑造神经元网络信号。这些细胞参与一个动态系统——神经血管单位,其中包括围绕BBB并传递CNS细胞与外周之间相互作用的细胞。
最近的研究确定,小胶质细胞通过自我更新维持在大脑中,并维持与神经元的长期互动。此外,小胶质细胞可以释放炎性细胞因子来影响神经元活动和神经递质受体的运输以及基因表达。
小胶质细胞和神经元之间的相互交流可能在整个生命周期中促进神经可塑性、神经发生、增殖、修剪和神经退化,并且可能在压力和神经炎症反应中起关键作用。
作为对压力的反应,小胶质细胞在与抑郁样症状有关的皮质边缘区域内发生形态和功能的动态变化。在压力条件下,神经内分泌通路微调中枢和外周免疫反应,导致单核细胞运输和启动,随后小胶质细胞表型发生变化,并最终导致神经炎症,这反过来又会导致多种压力相关疾病的发展,包括抑郁症。
◮ 星形胶质细胞——大脑功能的关键参与者
应该注意的是,中枢神经系统(CNS)中最常见的神经胶质细胞类型是星形胶质细胞,它们是维持大脑功能、调节神经传递、新陈代谢和能量供应的关键参与者。
据报道,在抑郁症中,星形胶质细胞的密度和数量有所减少。最近使用易位蛋白18 kDa(TSPO)作为反应性星形胶质细胞和小胶质细胞标志物的人脑成像研究表明,MDD患者的神经炎症增加,抗抑郁治疗减少了神经炎症。
综上所述,这些发现清楚地表明,抑郁症是一种复杂的精神疾病,与压力适应不良有着内在的联系,这会导致HPA轴和免疫系统失调。在过去的几年里,很明显,这种改变的压力和炎症反应会聚集在大脑功能上,从而破坏正常的神经免疫稳态。
因此,在免疫精神病学领域,人们的热情伴随着这样一个想法,即针对这种改变的压力免疫轴可能会产生治疗抑郁症的新方法。然而,最近出现了一个新的参与者——肠道微生物群——它也是压力和炎症的关键调节因子,因此它在抑郁症中的作用也正在研究中。
哺乳动物肠道是无数微生物的生活环境,这些微生物统称为肠道微生物群。新出现的证据支持胃肠道微生物群与内分泌和免疫系统的双向通信在介导关键的大脑过程,包括神经炎症、压力轴激活、神经传递和神经发生)。此外,在心理学中,人们越来越认识到微生物群-肠-脑轴在精神病理学中的作用。
肠道微生物群影响免疫细胞各种亚群的相对种群、迁移和表型,不同的研究说明了肠道微生物种群如何在炎症、感染和自身免疫时影响粘膜表面的先天性和适应性免疫反应。
事实上,已经表明肠道免疫系统是一个复杂的结构,它已经发展出特定的机制来确保共生细菌负荷得到维持,如果细菌穿过肠道屏障,这些将被免疫系统靶向并消除,防止它们可能侵入外围。另一方面,共生菌还通过直接识别T细胞、树突状细胞或直接识别微生物代谢物或产物(如短链脂肪酸)来触发调节性 T 细胞的激活,从而塑造免疫反应。
▸ 微生物组与免疫脑信号传导
微生物群有助于免疫反应的启动、教育和激活;反过来,免疫系统在维持和调节肠道细菌的数量和多样性方面发挥作用。目前的证据表明,在稳态条件下,保持健康和动态的低度炎症基调,以在肠道免疫和肠道神经系统与大脑之间持续交流。
◮ 微生物群与神经炎症密切相关
除了在肠道水平影响免疫系统外,微生物群还与小胶质细胞的严格调节有关。事实上,微生物组与通过调节短链脂肪酸(SCFA)调节神经炎症过程有关,短链脂肪酸是纤维代谢的微生物衍生副产品,特别是在帕金森病的动物模型中。值得一提的是,单核细胞显示游离脂肪酸受体(FFAR),这是SCFA的内源性分子靶标之一。
越来越多的证据表明,肠道微生物组在介导神经炎症过程中发挥着令人信服的作用。在一项引人入胜的研究中,发现脑海绵状血管畸形——增加癫痫发作和出血性中风风险的血管缺陷——受到革兰氏阴性菌和脂多糖激活内皮Toll样受体4(TLR4)的刺激,TLR4参与先天免疫的激活。相反,TLR4信号传导的药物阻断阻止了牵涉畸形的发展。
更重要的是,这些畸形未能在无菌小鼠中发展,抗生素暴露显著降低了对牵涉畸形的易感性。综上所述,这些结果表明,肠道微生物组无疑参与了影响大脑形态和功能的先天免疫信号通路。
◮ 肠道微生物群影响大脑的免疫结果
调节和炎症适应性免疫反应的损害也与缺血性中风的发展有关。已发现抗生素暴露会改变免疫肠道功能,同时减少小鼠的缺血性脑损伤。在这个模型中,肠道T细胞在中风后迁移到脑膜,这被特定肠道细菌群的消耗所逆转。通过观察到无菌小鼠以淋巴细胞依赖性方式免受缺血病变的发展,进一步加强了细菌定植与中风结果的相关性,进一步加强了肠道微生物组在影响大脑的免疫结果中的作用。
关于炎性小体与微生物群-肠道-大脑轴的相互作用,NLPR6 已被证明对肠道微生物代谢物信号做出反应,导致宿主免疫反应的激活。caspase-1 的基因缺失是该信号级联反应的关键组成部分,可减少小鼠的抑郁样行为,同时导致肠道微生物组改变。
应激小鼠的抗生素治疗以类似于caspase-1敲除小鼠的方式促进肠道微生物组的再平衡,进一步暗示肠道微生物组在调节影响大脑功能的炎性小体途径中的作用。
综上所述,这些结果挑战了肠道微生物群、免疫系统和神经发育之间的关系在成年后是不变的既定概念。事实上,健康多样的胃肠道微生物群被认为对于维持平衡的免疫系统和适当的大脑功能至关重要。
◮ 微生物群还可通过迷走神经影响肠脑信号
微生物群和免疫系统可能与肠脑信号相互作用的另一种机制是通过迷走神经。迷走神经的末梢对来自肠道神经系统的神经通讯和肠道释放的炎症因子很敏感,它们通过脑干将这些感觉信息传递到大脑的更高中枢。
最近使用迷走神经切断术的研究报告称,肠道微生物群在调节神经发生中起关键作用,可能是通过涉及脑源性神经营养因子(BDNF)的机制。
脑源性神经营养因子可以参考我们以前的文章:探索大脑健康的宝藏:神经营养素、肠道菌群与我们的思维宇宙
这些发现支持早期的工作,其中益生菌鼠李糖乳杆菌JB-1对压力诱导的抑郁和焦虑样行为的积极影响通过迷走神经切断术消融。迷走神经刺激在某些抑郁症病例中作为治疗方法的作用。
除了在对神经发生的积极影响中发挥作用外,来自大脑中高级中心的传递通过传出的迷走神经冲动抑制了外周炎性细胞因子,如TNF-α和脾脏中的IL-1β,从而影响肾上腺的局部事件;因此,这种交流在调节压力反应中发挥作用。
尽管研究尚未明确确定肠道微生物群与通过迷走神经调节免疫和压力相关事件的直接联系,但现有数据表明,迷走神经可能在某种程度上导致了肠道微生物群对抑郁症的一些影响。
缺乏调查肠道微生物组在宿主心理健康中的作用的机制、纵向临床研究。有证据表明抑郁症个体的微生物群组成发生了变化,粪杆菌属(Faecalibacterium)的丰度与症状严重程度呈负相关。
一项观察性研究报告称,用单一和复发性抗生素治疗攻击微生物群会增加患抑郁症和焦虑症的风险。最近,一项大型人群研究表明,Coprococcus和Dialister菌株不仅是生活质量提高的预测因子,而且在未经治疗的抑郁症患者中也持续耗尽,而 Butyricicoccus与抗抑郁治疗有关。
有趣的是,最近的研究表明,MDD 患者的粪便移植会影响受体动物的抑郁样行为,从而表明肠道微生物组进一步参与抑郁症。
▸ 压力和抑郁患者的微生物组
许多不同的压力范式——包括慢性社交失败、克制压力、母体分离、拥挤、热应激和声学压力——会影响肠道中微生物的组成,如临床前模型所确定的那样。
多项研究侧重于了解肠道微生物群在通过抗生素给药、益生元和益生菌干预以及粪便移植对肠道微生物群进行积极或消极操作后暴露于压力中的作用,以及对特定无病原体和无菌动物的压力的反应。
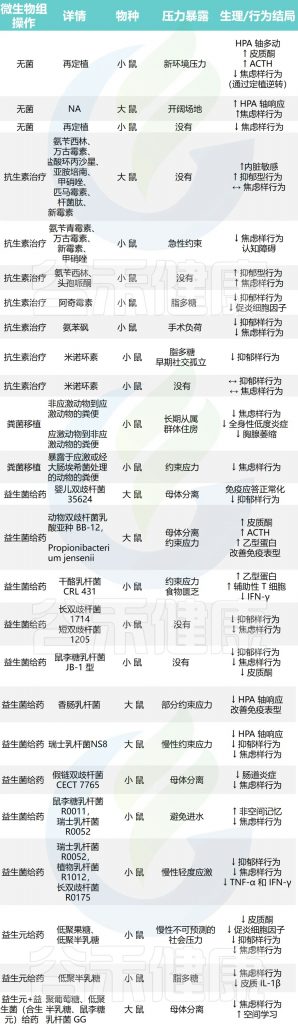
与微生物群免疫应激反应相关的微生物群调控的临床前研究,如下图所示:
◮ 肠道微生物群可以对神经行为产生不同影响
临床前研究表明,无菌动物——从出生起就在无菌环境中饲养,因此缺乏胃肠道细菌——表现出的行为和表型结果,可以通过细菌定植来逆转,并且对急性应激的敏感性增加。
剖析肠道微生物群对压力生理学影响的另一种方法是通过暴露于抗生素来消融稳定的核心细菌种群。越来越多的研究表明抗生素治疗后的行为受到调节,这表明特定的肠道细菌种群可能会对神经行为结果产生积极或消极的影响。
然而,仍然缺乏进一步的临床前研究来检查抗生素给药对响应应激暴露的神经内分泌水平变化的影响。鉴于肠道细菌可能会影响压力反应和情绪行为,多项研究也探讨了益生元和益生菌给药在压力模型中的效果。事实上,益生元和益生菌干预都已被证明可以防止压力的有害影响,可能是通过调节免疫系统,同时改善行为(见上表)。
此外,从应激小鼠到幼稚受体的粪菌移植导致焦虑样行为以及单核细胞和活化小胶质细胞在海马体中的积累,而用来自未应激动物的有益微生物治疗通过改善肠道炎症来改善焦虑样行为。
综上所述,越来越多的证据表明,肠道微生物组无疑参与了应激反应的潜在机制,塑造肠道微生物群落可能会为更有针对性的应激信号传导操作的发展提供一些启示。
▸ 迈向精神益生菌
最近创造了精神益生菌的概念,以表示赋予心理健康益处的活细菌。它的定义已扩大到指任何促进大脑健康的微生物组有针对性的干预。
◮ 精神益生菌改善了情绪反应
尽管研究仍处于早期阶段,但越来越多的数据,尤其是健康志愿者的数据,支持这一概念。例如,用益生菌瑞士乳杆菌R0052和长双歧杆菌R0175和低聚半乳糖治疗导致皮质醇减少,从而促进受试者对压力的适应力并改善健康受试者的情绪反应。
此外,在功能性磁共振成像研究中,摄入益生菌鸡尾酒导致大脑活动和情绪信息处理发生变化和与消极情绪相关的消极想法的减弱,支持肠道微生物群在压力和情绪反应中的重要性。
食用长双歧杆菌1714与健康受试者的压力减轻和认知改善有关。尽管有这些发现,但构成微生物群和压力反应之间通信的确切机制仍有待阐明。最近,益生菌治疗被证明可以改善压力反应以及重度抑郁症(MDD)和肠易激综合征患者和产后抑郁症的抑郁评分。
然而,关于益生菌作为MDD预防措施的整体疗效尚未达成明确的共识。在过去的十年中,科学界,特别是在社会心理学领域,开始了一场关于科学可重复性和复制性的重要讨论。尽管精神益生菌具有巨大的潜力并且广受欢迎,但不仅在科学界,而且在公众中,在从仍然有限的证据中得出结论时需要谨慎。因此,很明显,需要进行菌株选择和更多的纵向大规模研究来证明任何潜在的心理益生菌干预的特定作用。
鉴于压力、炎症和微生物组都是抑郁症的危险因素,人们对了解神经生物学回路和细胞机制越来越感兴趣,它们各自可以影响重度抑郁症(MDD)症状。
成人海马神经发生正在成为这样一种过程。1960年代的开创性研究首次提供了证据,证明成年大鼠和豚鼠海马体中产生了新的神经元,结束了神经元出生后在中枢神经系统中不再产生的长期教条。现在人们普遍认为,成体神经发生主要局限于侧脑室内衬的脑室下区和包括大鼠、小鼠和人类在内的几个物种海马齿状回(DG)的颗粒下区(SGZ)。
在海马体DG的SGZ中,神经祖细胞(NPC)增殖并分化为星形胶质细胞、少突胶质细胞或神经元,然后迁移到星形胶质细胞层(GCL)中,并最终投射到海马体的CA3区域,在那里它们成为功能齐全的神经元,集成到大脑回路中。虽然最近对人类一生中海马神经发生的维持存在一些争议,但人们普遍认为神经发生发生在海马中并具有功能相关性。然而,在临床神经影像技术取得进步之前,很难完全确定神经发生在这些临床情况下的确切作用。
▸ 神经发生,压力和抑郁
质疑成人海马神经发生在抑郁症中潜在作用的主要驱动因素之一是,慢性压力是抑郁症的一种风险和诱发因素,一直被报道会减少成人海马神经发生,而抗抑郁治疗会逆转这种情况。
由于海马体参与 HPA 轴负反馈的调节,因此推测成人海马神经发生的损伤可能与 HPA 轴反馈回路的破坏有关,从而加剧其失调,正如在很大一部分 MDD 患者中观察到的那样。
事实上,有一些临床前证据表明,成人海马神经发生可以缓冲皮质酮和对压力的行为反应。然而,在没有压力的情况下,神经发生消融似乎不会诱导抑郁表型。另一方面,使用不同类型的抗抑郁药和其他诱导抗抑郁样作用的手法进行长期治疗,例如电休克疗法和锻炼,已被证明会增加啮齿动物的成年海马神经发生。来自人类死后脑组织的一些证据表明,抗抑郁药物在抑郁症中会增加海马祖细胞增殖。
临床前模型还提供了证据表明,某些抗抑郁药的至少部分行为影响需要完整的成人海马神经发生。有趣的是,与抑郁症中观察到的 HPA 轴多动症非常相关,已经证明成人海马神经发生是通过抗抑郁治疗使 HPA 轴功能正常化所必需的。
抗抑郁药发挥其治疗效果所需的时间与新生成的海马细胞成熟并整合到神经元网络中所需的时间相匹配,这符合抗抑郁活性需要成人海马神经发生的观察结果。
此外,压力通过诱导抑郁样行为对成人神经发生产生有害影响,而这种影响可以通过抗抑郁药治疗来逆转。
▸ 神经炎症和海马神经发生
炎症对成年海马神经发生影响的第一个证据是,当外周或中枢注射 LPS 到啮齿动物减少神经发生,同时增加海马体 DG 中小胶质细胞的数量时。从那时起,很明显,经典的促炎细胞因子 IL-1β、IL-6 和 TNF-α 是海马神经发生的主要负炎调节剂。
由于海马 IL-1β 水平的长期升高对记忆和认知有不利影响,并且在动物研究中也会促进行为抑郁,海马体中同源 IL-1 I 型受体(IL-1R1)的受体表达升高,并且抗抑郁治疗降低海马体中的 IL-1β 水平,这种促炎细胞因子现在被确定为抑郁症海马功能障碍的重要因素也就不足为奇了。
除了影响成熟神经元的功能外,IL-1β还可以直接与新生的神经元相互作用,这是由于IL-1R1在海马体的神经祖细胞上的表达。几个小组现在已经发表了关键研究,证明 IL-1β 对海马神经发生产生负面影响,并且存在相关的行为后果。
事实上,IL-1β 被认为对慢性压力诱发的抑郁症很重要,因为它对海马神经发生有负面影响。此外,研究报告说,IL-1β诱导的海马神经发生的减少被体外和体内的抗抑郁治疗逆转。
IL-1β 主要由海马体中的小胶质细胞产生,因此这种在塑造神经元发育中起重要作用的动态细胞因其通过海马神经发生的变化对压力诱导的抑郁样行为的贡献而被研究。有趣的是,阻断压力诱导的小胶质细胞活化和抗抑郁药丙咪嗪独立地挽救了压力诱导的抑郁样行为并抑制了神经发生。除了促炎细胞因子和小胶质细胞外,有证据表明T细胞也是维持海马神经发生所必需的。
▸ 微生物组和海马神经发生
越来越多的证据表明,在成人海马神经发生的背景下,肠道微生物组也是免疫系统的关键调节剂。
事实上,无菌小鼠的成年海马细胞增殖和神经发生水平增加,而从三周龄开始的微生物再定植并不能阻止这些。有趣的是,这些影响主要在背侧海马体而不是腹侧海马体中观察到,这可能对主要参与背侧海马体的认知功能(如空间学习和记忆)产生有趣的影响。
另一方面,最近的一项研究表明,抗生素治疗减少了成人海马神经发生,这被益生菌治疗和自愿运动逆转,不是通过粪便移植,而是通过调节 Ly6Chi 单核细胞运输。因此,肠道微生物组似乎参与了成人海马神经发生的调节,可能是通过与免疫系统的相互作用。
关于益生菌是否会影响成人海马神经发生的数据有限,但一项研究报告称,用益生菌制剂(瑞士乳杆菌 R0052 和长双歧杆菌 R0175 组合)治疗可以防止应激诱导的表达双皮质素(神经发生的标志物)的细胞数量减少。
下图展示了成人海马神经发生是参与抑郁症的精心编排的通路中的重要调节剂。这个过程受到饮食和运动以及健康的免疫系统和肠道微生物组的积极影响,同时受到压力和异常免疫系统和肠道微生物组等因素的负面影响。成人海马神经发生似乎很可能处于这个邪恶的三位一体的核心,因为这个关键过程是由这个三位一体调节的。
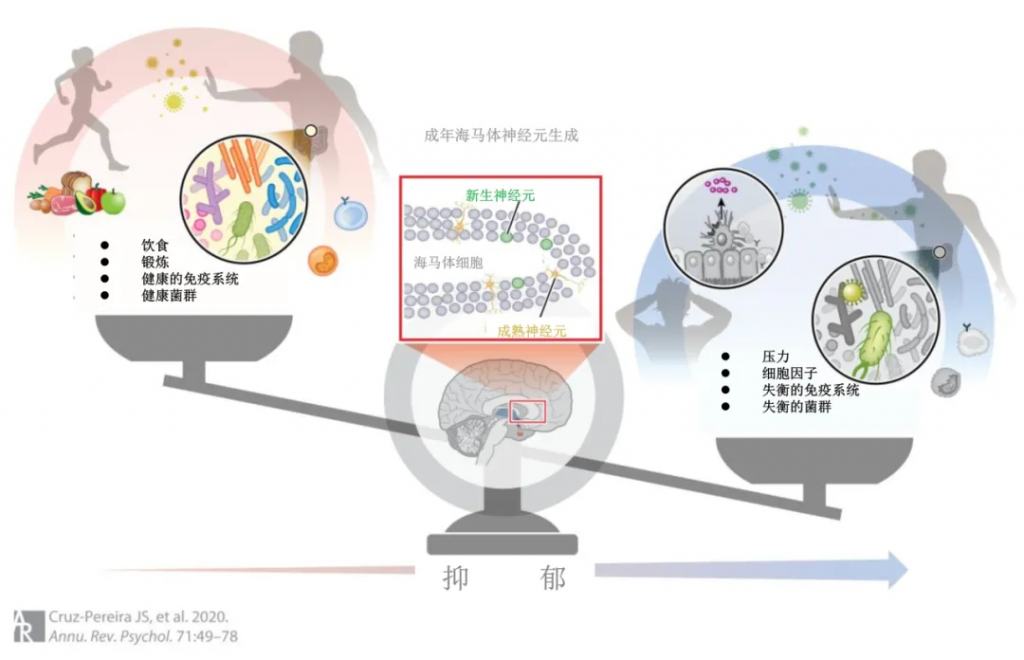
从动物研究中可以清楚地看出,成人海马神经发生是抗抑郁作用的关键,并且一直被证明会受到压力的抑制。最近重新认识到成人神经发生在人类海马体中的重要性进一步推动了发现针对它的策略,以维持正常的海马功能。
鉴于肠道微生物组对这一中心过程的潜在调节,未来的研究应该解决可能将肠道微生物组与大脑联系起来的潜在机制途径以及成体神经发生的正确整合,特别是在压力、炎症和随后的抑郁的情况下。
近几十年来,生活方式,尤其是饮食发生了巨大的转变。从本质上讲,很大一部分人类采用西式饮食,这些饮食富含加工食品、糖和脂肪,这与肥胖、糖尿病和心血管疾病的患病率不断上升有关。
◮ 更健康的饮食可能带来更好的认知功能
另一方面,地中海饮食等健康饮食提供必需的常量营养素,如类黄酮、omega-3脂肪酸和omega-6多不饱和脂肪酸,这些营养素与更好的预期寿命和健康状况有关。然而,报告也将西方饮食的消费与认知和情绪障碍联系起来,而地中海饮食则与更好的认知功能有关。
此外,最近的一项系统评价得出结论,在观察性研究中,坚持健康饮食,尤其是传统的地中海饮食,或避免促炎饮食,似乎可以提供一些预防抑郁症的保护。这些研究为预防抑郁症的营养方法提供了明确的证据。了解支撑这些影响的机制将很重要,尤其是在微生物群免疫应激水平上。
事实上,最近的研究表明,不健康食物摄入量较高和营养丰富的食物摄入量较低与海马体积减少有关,相反,更健康的饮食与人类海马体积较大有关。
事实上,在临床前模型中,不同的饮食干预与海马体的神经元可塑性有关,这进一步强调了健康饮食在促进大脑体内平衡和功能方面的重要性。此外,最近表明,在正常的抗抑郁药或心理治疗中加入改良的地中海饮食可以对抑郁症产生显著的积极影响。鉴于地中海饮食显著影响微生物群组成,很容易推测微生物群可能在此类饮食干预的有益效果中发挥作用。
因此,饮食改变似乎是一种促进整体健康的有趣干预措施。事实上,人们对生活方式的改变越来越感兴趣,特别是采用独特的饮食方式——如旧石器时代、生酮饮食和植物性饮食等——被认为可以促进健康益处,而这可能反过来与炎症和/或肠道微生物组的调节有关。
此外,鉴于早期生活环境深刻塑造了神经发育,并且饮食与神经可塑性有关,因此评估饮食在早期生活中的相关性将极为重要。进一步的研究应该解决这些饮食的潜在大脑健康益处及其潜在机制。
肠道微生物组、免疫力和压力反应之间的微妙平衡对神经系统健康至关重要。最终,该矩阵中一个或多个因素的破坏(例如,由消极的生活事件)会导致大脑生理和行为失调,从而导致重度抑郁等情绪障碍的发展。
尽管在抑郁症的背景下单独研究了这个邪恶的三位一体的组成部分,但在临床前和人类研究中,需要在机械层面上做很多工作,以梳理它们各自的相对贡献以及它们如何相互作用。
如本文开始所述,有大量患者对抑郁症的常规治疗没有反应,了解这三位一体如何在难治性抑郁症中发挥作用是进一步研究的重要途径。
我们现在认识到,不平衡的压力和炎症反应无疑与抑郁症的发展和维持有关,但最近的证据表明,肠道微生物组也在这些途径的不平衡和神经心理学中发挥作用,这表明针对这些因素的治疗可能更有效。
微生物群在疾病中的作用现在才刚刚显现出来,尤其是在神经心理学领域。研究表明,肠道微生物改变在抑郁症患者和抗抑郁药物后的作用;然而,进一步的研究应该检查心理疗法(如认知行为疗法)后微生物组的变化。
因此,心理益生菌干预可能会增强现有疗法的有益效果,从而可能产生更好的结果。然而,确实需要对特定菌株或其组合进行大规模、双盲、安慰剂对照试验来验证这些方法。此外,包括营养、均衡饮食和定期锻炼在内的健康生活方式可能有助于肠道微生物组的平衡和成体神经发生,这反过来又促进了与免疫系统的相互交换和压力反应,从而可能预防抑郁症等疾病。
总之,抑郁症的理想治疗方法可能是重置免疫力、压力生理学和微生物群的不平衡。我们等待这最后一块拼图,但目前的研究表明,这是一个可行的阐明策略。
主要参考文献
Cruz-Pereira JS, Rea K, Nolan YM, O’Leary OF, Dinan TG, Cryan JF. Depression’s Unholy Trinity: Dysregulated Stress, Immunity, and the Microbiome. Annu Rev Psychol. 2020 Jan 4;71:49-78.
Cussotto S, Clarke G, Dinan TG, Cryan JF 2019. Psychotropics and the microbiome: a chamber of secrets. Psychopharmacology 236:1411–32
Dantzer R. 2018. Neuroimmune interactions: from the brain to the immune system and vice versa. Physiol. Rev. 98:477–504.
de Kloet ER, Joels M, Holsboer F 2005. Stress and the brain: from adaptation to disease. Nat. Rev. Neurosci. 6:463–75
DePalma G, Blennerhassett P, Lu J, Deng Y, Park AJ et al. 2015. Microbiota and host determinants of behavioural phenotype in maternally separated mice. Nat. Commun. 6:7735
DePalma G, Collins SM, Bercik P, Verdu EF 2014. The microbiota-gut-brain axis in gastrointestinal disorders: stressed bugs, stressed brain or both?. J. Physiol. 592:2989–97
Del Grande da Silva G, Wiener CD, Barbosa LP, Goncalves Araujo JM, Molina ML et al. 2016. Pro-inflammatory cytokines and psychotherapy in depression: results from a randomized clinical trial. J. Psychiatr. Res. 75:57–64
Derecki NC, Cardani AN, Yang CH, Quinnies KM, Crihfield A et al. 2010. Regulation of learning and memory by meningeal immunity: a key role for IL-4. J. Exp. Med. 207:1067
Desbonnet L, Clarke G, Traplin A, O’Sullivan O, Crispie F et al. 2015. Gut microbiota depletion from early adolescence in mice: implications for brain and behaviour. Brain Behav. Immun. 48:165–73
Desbonnet L, Garrett L, Clarke G, Kiely B, Cryan JF, Dinan TG 2010. Effects of the probiotic Bifidobacterium infantis in the maternal separation model of depression. Neuroscience 170:1179–88
谷禾健康
自闭症谱系障碍 (ASD) 是一种神经发育障碍,其特征是社交沟通和行为障碍,经常伴有兴趣或活动受限和重复的模式。遗传和环境都与自闭症有关。
近年来,多种类型的研究都将肠道菌群与自闭症的病因联系起来。前面我们的文章有提到,肠道微生物群影响宿主健康的许多方面,包括免疫系统控制、肠道激素调节和神经传递。它会改变摄入的药物及其代谢、毒素清除以及多种影响宿主的物质的产生。肠道菌群可以通过“肠-脑轴”的相互关系直接或间接地影响大脑。
近期研究表明,肠道微生物群可以通过中间细胞因子和代谢物诱发神经炎症。炎症偏差是肠道微生物群影响自闭症患者肠脑轴的潜在病因候选者。
神经炎症因素会导致肠道屏障完整性丧失、小胶质细胞激活和神经递质失调,从而导致自闭症。它强调了神经炎症中间体与自闭症患者肠道微生物群改变相关的潜在作用。具体而言,脑源性神经营养因子、钙卫蛋白、S100B、RANTES、嗜酸细胞趋化因子等细胞因子以及一些代谢物和微小RNA已被视为病因生物标志物。
了解肠道和大脑之间的相互作用,微生物群和神经炎症生物标志物的变化,是理解自闭症谱系障碍的病因、诊断、预后和治疗的基础背景。目前,自闭症谱系障碍的诊断是基于临床症状的,这可能会导致延误。基于与肠道微生物群相关的神经炎症过程的生物标志物可能是一种更客观精确可行的自闭症谱系障碍检测方法。
本文我们来详细了解一下神经炎症生物标志物在自闭症谱系障碍的发病机制和潜在诊断试验中的作用,还概述了益生菌及其他营养干预措施用作自闭症儿童的治疗策略及孕妇的饮食建议。
深入了解自闭症的复杂病理机制,结合生物标志物监测、肠道菌群管理和营养干预,或将为受影响的个体及其家庭提供更有针对性的支持和干预措施。
近 20 年前,有人提出了肠道菌群与自闭症之间的潜在关联。尽管自闭症的确切病因尚不完全清楚,但现有文献表明,自闭症患者存在肠道菌群失调和神经炎症。
自闭症的肠道菌群
总体而言,自闭症人群表现出菌群失调的迹象,与健康对照组相比,下列菌群和许多其他微生物的丰度有所不同:
拟杆菌门 / 厚壁菌门
普雷沃氏菌
梭菌属
乳杆菌属
双歧杆菌属
粪杆菌属
链球菌属
肠杆菌科
疣微菌属
梭杆菌门
大肠杆菌
肠球菌属
阿克曼菌属
考拉杆菌属
肠道菌群失调的识别与炎症途径
最近也有研究指出,自闭症儿童的肠道菌群失调和炎症可通过宿主粪便 DNA 特异性甲基化来识别。患有菌群失调的自闭症患者的炎症和免疫途径显著丰富,包括IL-2、IL-6 和 IL-12 的产生以及 Toll 样受体 (TLR3) 信号通路的激活。
多项研究一致证实了早期的发现,即菌群失调在各种神经退行性和神经精神疾病中会引起神经炎症。
自闭症儿童微生物组改变的潜在影响
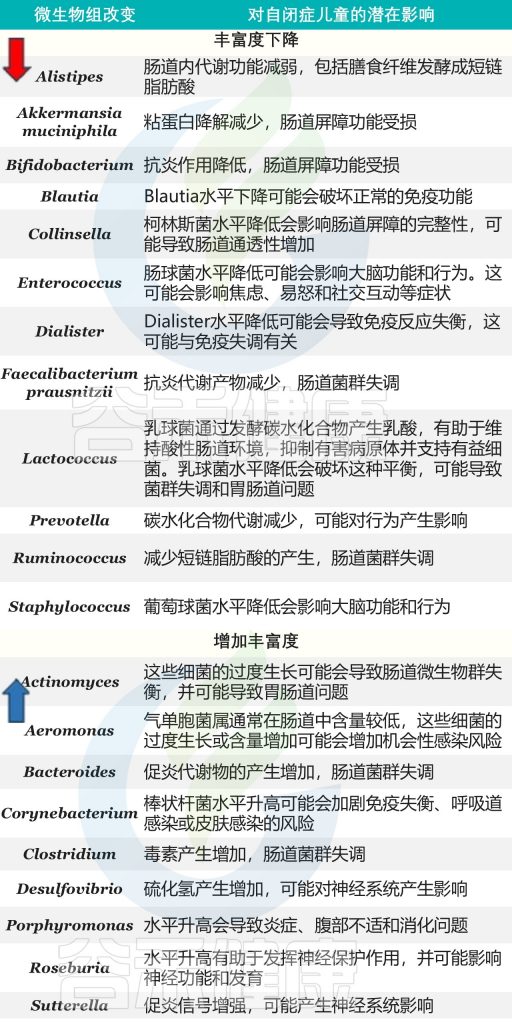
doi.org/10.1016/j.bbr.2024.115177
菌群失调:免疫信号通路中断与自闭症严重程度
NLRP3炎症小体、1型干扰素和NF-κB信号通路等免疫信号通路的中断是菌群失调可能导致的后果之一。Th17/Tregs比例发生改变,巨噬细胞极化、TNF-α、IL-1β、IL-18、IL-6 失衡也是可能的。
另一方面,炎症和免疫失调已被证明与自闭症的发展和/或严重程度有关。先前对自闭症病例的研究表明,TNF-α、干扰素-γ、IL-2、IL-4、IL-5、IL-6、IL-8、IL-17、IL-10 等炎症标志物的水平升高。
神经炎症生物标志物与微生物交替和自闭症行为的关联研究
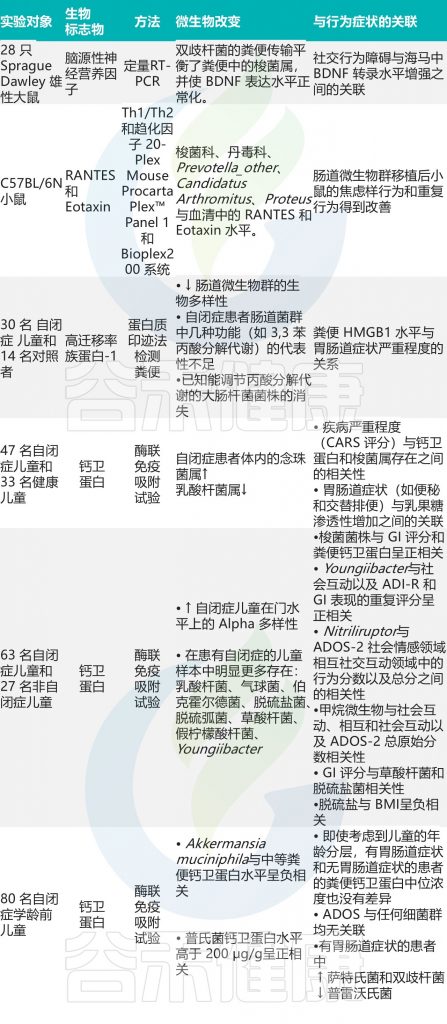
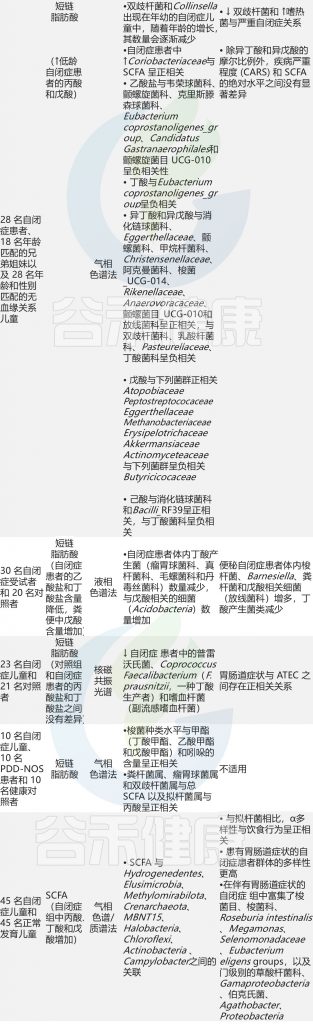
doi.org/10.1007/s10753-024-02061-y
关于自闭症患者肠道微生物组成和代谢物与炎症,这三个因素之间的确切关系需要进一步研究。总体而言,肠道菌群似乎通过炎症在自闭症中发挥关键作用。
一些研究已将蛋白质和肽类生物标志物作为自闭症早期诊断的研究对象。S100 钙结合蛋白 β 亚基 (S100B) 在星形胶质细胞和其他神经外细胞(包括EGC)中表达。
注:EGC,enteric glial cells,肠神经胶质细胞,EGC是肠神经系统的重要组成部分。它调节肠道稳态、参与维持肠黏膜屏障功能,调控炎症反应,在消化及非消化系统疾病中发挥着重要作用。
S100B对神经元的影响取决于浓度
浓度在几纳摩尔剂量下可产生营养作用,在微摩尔水平下可产生毒性。
S100B 促进神经炎症
细胞外蛋白 S100B 与促炎细胞因子协同作用,在较高浓度下可作为细胞因子,从而显著促进神经炎症。
自闭症 S100B 显著升高
尽管存在争议,但多项研究发现与健康人相比,自闭症患者的 S100B 显著升高,支持该因素在 ASD 的病因和发展中可能发挥的作用。
外周 S100B 浓度升高的来源可能是受损的神经元或 EGC。
在最近的一项研究中,血浆 S100B 水平与粪便钙卫蛋白浓度(胃肠道炎症状态的客观标志物)之间的相关性表明,不仅脑星形胶质细胞,还有 EGC 也可能参与自闭症的病理生理学。
肠道微生物群与S100B的相互作用
有一种假说认为,自闭症患者肠道胶质细胞衍生的 S100B 表达的改变可能是由微生物群改变、肠道屏障破坏甚至致病菌引起的,这些因素共同诱发肠道炎症并将 EGC 转化为反应性 EGC。
另一项小鼠体内研究表明,肠道微生物群的多样性随着 S100B 水平或口服给药而增加。
厚壁菌门(包括乳杆菌)和拟杆菌门(包括Barnesiella和丁酸杆菌属)均受 S100B 水平的影响。然而,在一组自闭症儿童中观察到拟杆菌门水平较高,而厚壁菌门水平较低。可以考虑研究 S100B 作为自闭症诊断和治疗中的潜在生物标志物。
BDNF(脑源性神经营养因子) 是神经生长因子家族(神经营养因子)的蛋白质成员。BDNF 在突触前位点(调节神经递质释放)和突触后位点(增强离子通道功能)中都发挥着关键作用,因此它通常会影响神经可塑性,从而影响行为相关疾病。
BDNF与自闭症病理生理学的关联
多种神经系统疾病都存在 BDNF 水平异常,包括精神分裂症、抑郁症甚至自闭症。最近的研究显示,与对照组相比,自闭症患者的 BDNF 水平发生了改变,这表明 BDNF 可能在自闭症病理生理学中发挥作用。
与重度自闭症相比,轻度表型患者的 BDNF 水平相对较高,强调了该因子可能具有保护作用。自闭症患者脑内抗凋亡信号通路中 BDNF 的下调是自闭症病理生理的可能机制之一。
作为神经保护剂的 BDNF 表达减少可能是由炎症因子(包括 IL-1β 和 TNF)升高引起的;因此,它可能在神经炎症中起负调节作用。
肠道菌群与BDNF的相互影响
自闭症患者肠道菌群失调可能通过免疫失调和释放穿过血脑屏障的炎症因子(如 IL-1β)导致这种炎症状态。
还需要进一步研究了解自闭症患者肠道微生物改变的诱导和改变,是否可以通过 BDNF 水平进行监测和控制。
受激活、正常 T 细胞表达和分泌的调节,RANTES(CCL5)和嗜酸细胞趋化因子(CCL11)是由多种细胞释放的促炎趋化因子,包括血细胞、成纤维细胞、内皮细胞、上皮细胞、神经元和神经胶质细胞。
详情展开如下:
RANTES
RANTES是一种重要的趋化因子,属于CC亚家族的β趋化因子。它由多种细胞类型表达和分泌,包括T细胞、单核细胞、NK细胞、上皮细胞和血小板等。
RANTES的主要功能是通过与其特异性受体结合来诱导白细胞向炎症部位迁移,从而在炎症反应中起关键作用。
这些受体包括CCR1、CCR3、CCR4和CCR5。RANTES不仅能够促进T细胞的活化和增殖,还能调节Th1/Th2细胞效应平衡。
嗜酸细胞趋化因子
嗜酸细胞趋化因子是一类属于CC趋化因子家族的小细胞因子,主要作用是选择性地募集嗜酸性粒细胞。
这些因子在多种组织中表达,并通过与特定受体结合来诱导嗜酸性粒细胞向特定位置迁移。主要包括CCL11、CCL24和CCL26。
不仅在过敏性疾病如哮喘和过敏性鼻炎中发挥重要作用,还参与了其他炎症反应和肿瘤的发展。
RANTES和嗜酸细胞趋化因子在自闭症中的神经炎症作用
自闭症儿童的血浆中 RANTES和嗜酸细胞趋化因子水平明显较高。由于RANTES和嗜酸细胞趋化因子充当促炎介质,它们的升高意味着两者都在 自闭症中发挥神经炎症作用。
尽管Shen等人报告 RANTES 或嗜酸细胞趋化因子与自闭症的行为模式之间没有显著相关性,但Han 等人和 Hu 等人分别发现 RANTES 和嗜酸细胞活化趋化因子与自闭症相关。此外,其他研究表明这两个因素的增加都与自闭症相关。
肠道菌群诱导RANTES介导的炎症
早期研究发现,NOD 样受体家族含有吡啶结构域的 6-肠道菌群轴以及随后的 IL-6 和 TNF 释放是肠道菌群失调与 RANTES 介导的免疫失调之间的可能联系。
关于基因编码的表达,已发现肠道菌群可以操纵嗜酸细胞活化趋化因子的表达水平。在这方面,接受抗生素治疗的小鼠的微生物组发生了改变,嗜酸细胞活化趋化因子升高,小胶质细胞结构不同。
小胶质细胞是中枢神经系统中的常驻免疫细胞,是抵御病原体和损伤的第一道防线。它们不断探测大脑环境,寻找感染、损伤或疾病的迹象。小胶质细胞对全身炎症信号特别敏感。TNF-α和IL-6等促炎细胞因子水平升高可激活小胶质细胞,使其从静息状态转变为活化状态。
激活的小胶质细胞可以吞噬细胞碎片、死细胞和病原体,并释放细胞因子和趋化因子来协调免疫反应。它们在中枢神经系统中发挥双重作用:促进炎症以抵御威胁,并在威胁过去后促进组织修复和炎症消退。慢性小胶质细胞活化与神经炎症有关。
粪菌移植与行为改善
此外,研究发现,小鼠的嗜酸细胞活化趋化因子水平在粪菌移植后发生了变化。关于肠道微生物群与自闭症的关系,在自闭症小鼠中,通过肠道微生物群移植,研究人员观察到焦虑样行为和重复性行为得到改善,而 RANTES 和嗜酸细胞活化趋化因子的水平得到改善。
这些结果表明,RANTES 和嗜酸细胞活化趋化因子在中枢神经系统突触传递和发育中起着重要作用,它们的水平与小鼠的微生物群结构有关。
特定菌群与趋化因子水平呈负相关
研究发现,梭菌科、丹毒丝菌科、普氏菌科、CandidatusArthromitus、变形杆菌属与 RANTES 和嗜酸细胞活化趋化因子的水平呈负相关。
通过益生菌改善
体内外用和口服益生菌治疗已报告与RANTES有关的菌株,包括副干酪乳杆菌SGL04、植物乳杆菌SGL07、发酵乳杆菌SGL10、短乳杆菌 SGL12裂解物以及鼠李糖乳杆菌GG有关。
同样,含有嗜酸乳杆菌、鼠李糖乳杆菌 GG和双歧杆菌的益生菌也改变了动物体内嗜酸细胞活化趋化因子基因的表达。
总的来说,这些研究的重要发现表明肠道菌群通过 RANTES和嗜酸细胞活化趋化因子的炎症因子在自闭症发病机制和严重程度中的潜在机制。
细胞因子粒细胞-巨噬细胞集落刺激因子 (GM-CSF) 驱动髓系造血细胞生物学的许多方面,包括存活、增殖、分化和功能活动。它还通过树突状细胞和 T 细胞功能影响免疫系统。GM-CSF 可引发中枢神经系统慢性炎症,并作为神经元生长因子刺激神经元和神经胶质细胞分化。
GM-CSF在自闭症中的复杂作用
一些早期研究认为自闭症患者的 GM-CSF 水平较低,但随后的研究在自闭症患者大脑中发现 GM-CSF 水平较高。
研究发现,在同时出现胃肠道症状的自闭症儿童中,GM-CSF-IL-1α、TNF-α 和干扰素-α 的水平较高。自闭症中 GM-CSF 水平的变化可能表明炎症过程可能与发育和神经免疫障碍有关。
Takada 等人的共培养实验结果首次表明,GM-CSF 诱导的巨噬细胞可抑制自闭症个体神经元的树突状生长。这种现象是通过促炎细胞因子IL-1α和TNF-α的分泌介导的,并可能导致更严重的行为影响。
肠道菌群与GM-CSF的关联
有趣的是,GM-CSF 水平随着肠道菌群的变化而变化,且主要与 IL-17a有关,IL-17a 是一种与 自闭症患者行为症状严重程度相关的细胞因子。
不同种类的肠道细菌与 GM-CSF 有关,包括副拟杆菌、普氏菌、链球菌、梭菌、罗伊氏乳杆菌、卷曲乳杆菌、粪肠球菌、布劳特氏菌、丁酸单胞菌、罗斯氏菌、Anaerotruncus、Blautia。一项重要发现表明,肠道菌群代谢物(如短链脂肪酸)可能会改变 GM-CSF 水平。
一项研究表明,使用含有长双歧杆菌、保加利亚乳杆菌和嗜热链球菌的益生菌可增加神经免疫因子 GM-CSF。
总之,肠道菌群改变导致 GM-CSF 神经炎症因子的变化,为了解自闭症患者发病机制提供了思路。
高迁移率族蛋白 1 (HMGB-1) 是 HMGB 蛋白家族中最丰富的成员之一,具有许多潜在作用。作为核蛋白,它在DNA调控活动中起关键作用。作为一种细胞外因子,它在免疫细胞对炎症作出反应时主动释放,也会被坏死或受损细胞被动释放。
HMGB-1的多功能性和在炎症中的作用
HMGB1 具有多种膜受体,称为病原体识别受体,其中 TLR4、TLR9 和晚期糖基化终产物受体 (RAGE) 是主要受体。通过与这些受体的相互作用,HMGB1可促进细胞炎症。HMGB1 可以穿过血脑屏障,促进神经突生长和细胞迁移,或介导损伤后的神经炎症。
HMGB-1与自闭症严重程度的相关性
已知自闭症患者血浆中的HMGB-1水平会升高,并且与自闭症的严重程度呈正相关。
另一种有效的炎症分子——表皮生长因子受体与自闭症儿童的症状严重程度有关,而 HMGB1 水平与之相关。
肠道功能障碍与HMGB-1水平的联系
研究发现,自闭症患者的 HMGB1 水平较高与胃肠道功能障碍较高有关,这可能意味着肠道是发病机制的一部分。
类似的研究表明,粪便中的HMGB1水平与自闭症儿童的胃肠道体征严重程度相关,这与自闭症相关的菌群失调有关。伴有肠道炎症的微生物群失调可导致单核细胞的激活,上调 HMGB1 的排泄,从而形成促炎反馈回路。
扩展阅读:炎症回路和肠道微生物
HMGB-1与自闭症行为表现的关联
较高水平的 HMGB1 和 TLR4 也与小鼠的自闭症样行为有关,可能是通过激活 HMGB1/TLR4 信号级联实现的。
自闭症儿童血清中 TLR4 水平升高,并且与他们的多动评分呈正相关。这进一步强调了炎症因子在自闭症行为表现中的作用。
HMGB-1在神经炎症中的作用机制
HMGB1/RAGE/TLR4 轴的激活会导致白细胞浸润到神经细胞中,从而引起持续的中枢神经系统炎症。有研究表明,神经炎症与自闭症的发生密切相关,其机制是激活炎症小体系统。此外,HMGB1 可以与内源性分泌性 RAGE 结合,导致血浆 RAGE 水平下降。这可能通过干扰神经肽催产素从外周到大脑的运输,导致自闭症的病理生理。
益生菌和肠道菌群改变对自闭症患者 HMGB1 水平的影响可以强化这一想法,并可以进一步研究。HMGB1 可能通过神经炎症在自闭症发病机制中发挥关键作用,并可以指导治疗策略。然而,它是自闭症病理生理学中一个非常潜在的因素,尚未明确阐明,需要更多研究。
骨桥蛋白 (OPN) 是一种可溶性促炎细胞因子,在自身免疫性神经炎性疾病中发挥着明确的作用,同时也是控制骨组织生物矿化的非胶原骨基质的组成部分。
OPN的功能多样,根据其位置和环境,OPN 参与局部炎症、细胞粘附、免疫反应、趋化性和防止细胞凋亡。
OPN在免疫调节中的作用
Heilmann 等人认为 OPN 可以在急性炎症期间激活免疫系统、减少组织损伤并刺激粘膜修复,同时在慢性情况下促进 Th1 反应并增强炎症。
OPN与神经系统疾病的关系
OPN 与多发性硬化症和阿尔茨海默病等神经心理疾病的发病机制有关。CD11c + 细胞表达分泌性磷蛋白1 及其编码蛋白 OPN 与阿尔茨海默病的认知障碍和常见神经病变有关。
注:CD11c+ 是一种在多种免疫细胞上表达的分子,主要与树突状细胞(DCs)相关。CD11c+ 标记物在免疫系统中具有重要的生物学功能。例如,在炎症性关节炎模型中,CD11c+ 树突状细胞的存在与疾病的严重程度呈负相关。
OPN在自闭症研究中的发现
有研究发现血清中 OPN 水平升高与病情严重程度有关,表明 OPN 在神经炎症和大脑特异性自身抗体的产生中的作用。他们的发现可以支持 OPN 是自闭症机制中重要神经炎症因子的观点。
在代谢紊乱中,人们讨论了 OPN 与肠道微生物群之间可能存在的相互作用。然而,OPN 与肠道微生物群在神经系统疾病(尤其是自闭症患者)中的作用尚未得到研究,这可能是未来研究的一个潜在目标。
钙卫蛋白是一种与钙结合的蛋白质,主要存在于中性粒细胞中,中性粒细胞是一种白细胞,在炎症和细胞损伤时会增加。
粪便中的钙卫蛋白可以指示肠道炎症,并可作为生物标志物。
钙卫蛋白与自闭症
考虑到肠道炎症在自闭症发展中可能发挥的作用,许多研究已经研究了自闭症患者中钙卫蛋白水平的关联,但结果并不一致。
一些报告显示,自闭症患者及其亲属的钙卫蛋白水平可能高于对照组。
钙卫蛋白与炎症及自闭症的关联
钙卫蛋白水平也与巨噬细胞炎症蛋白 1β 的较高表达呈中等相关性,而巨噬细胞炎症蛋白 1β 与自闭症诊断观察计划的沟通分量表和总分相关,表明它可能在微生物-神经元串扰中发挥作用。不太可能的是,一些研究发现自闭症患者和对照组之间的钙卫蛋白水平没有统计学上显著差异,因此,有和没有胃肠道症状的自闭症患者的钙卫蛋白水平没有明显变化。
钙卫蛋白水平与肠道菌群的关系
Laghi 等人的研究表明,钙卫蛋白水平较高与肠道中普雷沃氏菌较多和阿克曼氏菌减少有关,表明这些细菌可能分别具有炎症或保护作用。
益生菌疗法对自闭症患者的影响
Santocchi 等人发现益生菌疗法(包括 多种链球菌、双歧杆菌、乳杆菌)对自闭症患者的适应功能有有利影响,但对有或无胃肠道症状的钙卫蛋白水平没有明显影响。这表明益生菌对自闭症患者的影响比减少肠道炎症更为复杂,钙卫蛋白作为可能的神经炎症介质的作用应得到进一步研究。
总体而言,钙卫蛋白研究的异质性可能是由于试验个体的多样性、所用方法的准确性以及对微生物群改变和钙卫蛋白的同时研究不足造成的。但我们仍然可理解宿主微生物群失调和炎症诱导的钙卫蛋白会触发导致自闭症方面的神经炎症机制。
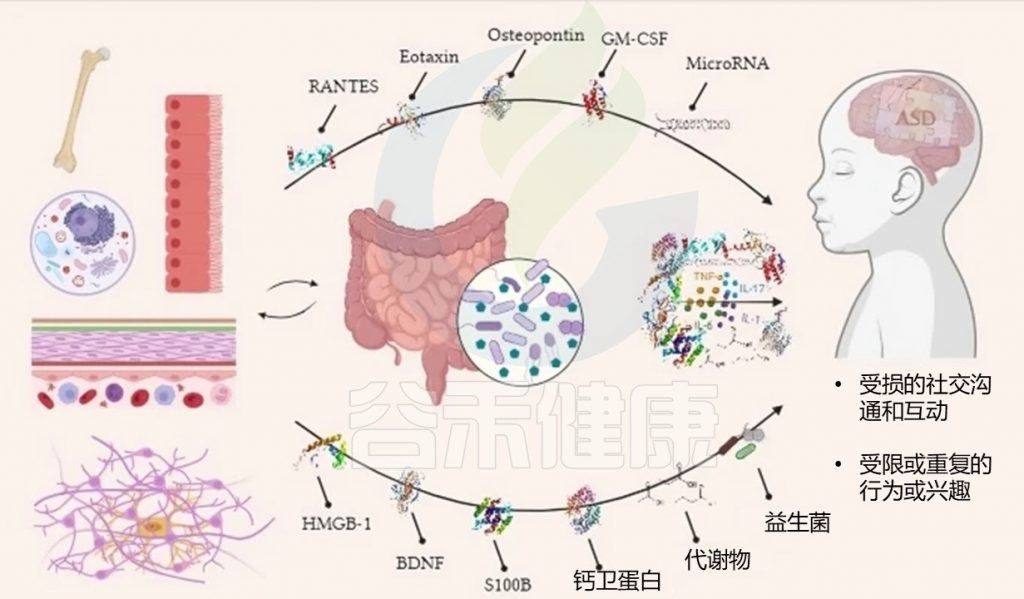
doi.org/10.1007/s10753-024-02061-y
在自闭症患者中,许多肠道微生物衍生的代谢物尤为突出,例如复合多糖或代谢氨基酸,它们可以作为神经递质。其中几种代谢物最近被讨论作为自闭症的早期诊断生物标志物。
特定菌群与短链脂肪酸的生产
肠道微生物通过一组重要的代谢物来调节宿主的生理机能,这些代谢物是短链脂肪酸,主要构成乙酸盐 (AA)、丁酸盐 (BTA) 、丙酸盐 (PPA)。
自闭症患者短链脂肪酸研究不一致
与某些研究不同,其他研究报告称自闭症患者的 乙酸盐、丙酸盐和丁酸盐水平高于对照组。这些肠道菌群相关的短链脂肪酸在宿主的炎症反应中表现出相互冲突的促炎和抗炎作用,可能是由于结合受体和局部浓度的差异。一些动物研究表明,补充微生物代谢物乙酸盐和丁酸盐可以逆转社会行为表型。
相反,在大鼠脑室内注射丙酸盐会诱发自闭症样症状,包括反应性神经胶质增生。丙酸盐可通过调节自闭症中的 PTEN/AKT 通路导致神经胶质增生、神经回路紊乱和神经炎症反应。
短链脂肪酸在自闭症和肠道微生物群中的意义
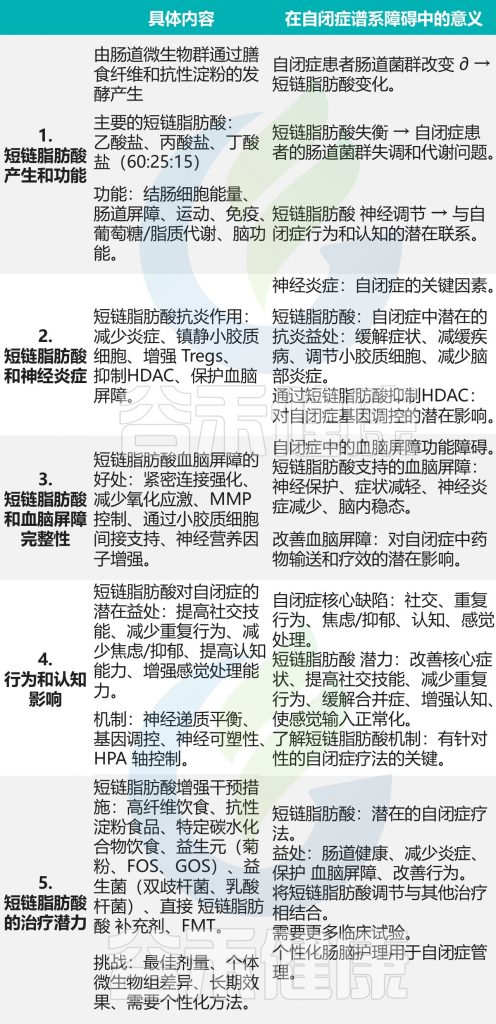
doi.org/10.1016/j.bbr.2024.115177
由于关于自闭症患者短链脂肪酸水平的发现数据不一致且尚待研究,因此需要进一步研究来验证短链脂肪酸在自闭症病理生理学中的潜在作用。它们可能被视为自闭症患者神经炎症生物标志物和肠道微生物群改变的指标。
COX1 和 COX2
脂质是大脑的主要成分,脂质代谢物是大脑发育和体内平衡的调节分子。作为脂质介质的主要脂质代谢物是前列腺素 (PG) 和白三烯 (LT),它们分别由花生四烯酸 (AA) 和其他不饱和脂肪酸在环氧合酶 (COX) 和脂氧合酶 (LOX) 的代谢下代谢。
已知 PGE2 信号在大脑形态形成中发挥作用,COX2/PEG2 信号受损与 MIA 模型中的自闭症发病机制有关。COX 通路涉及两种限速酶,COX-1 和 COX-2。
用于诱导 MIA 的内毒素和 MIA 模型中产生的炎症介质(IL-1β、IL-6、TNF-α、IFN、AA)均可诱导 COX-2。此外,有证据表明 COX-2 介导 N-甲基-D 天冬氨酸 (NMDA) 神经毒性。
COX2 和 自闭症
先前的研究使用自闭症患者的外周血单核细胞作为小胶质细胞的替代品,观察到在先天免疫刺激下上述细胞因子的产生增加。这种增加发生在有微生物感染后行为症状和认知功能波动史的自闭症患者中。有趣的是,自闭症患者血浆中的 COX-2 和 PGE2 升高,同时 α-突触核蛋白水平降低。因此,阻断 COX-2 可能有助于减轻自闭症患者的神经炎症和随后的神经元损伤。另一方面,脑中 COX-2 的上调可能具有神经保护作用,部分调节脑血流。
关于 COX-2 抑制剂在 ASD 患者中的临床试验数据很少。只有一项随机、双盲、安慰剂对照试验研究了 COX-2 抑制剂塞来昔布对 ASD 患者行为症状的疗效。
该试验将塞来昔布作为利培酮的辅助治疗,持续 10 周;使用异常行为检查表 (ABC) 评估行为症状。发现ABC分量表的易怒、嗜睡和刻板行为有显著改善。
当使用塞来昔布控制病毒性流感等综合征引起的 自闭症行为症状恶化时,也经常观察到 COX2 抑制剂塞来昔布减轻行为症状。吡格列酮具有多种抗炎作用,包括抑制小胶质细胞上 COX-2 的表达。吡格列酮对创伤性脑损伤有有益作用。
综上所述,COX-2抑制剂可能对有COX2激活迹象的自闭症患者有益,尤其是在急性和/或亚急性期。
自闭症患者中犬尿氨酸代谢产物的变化
例如,自闭症的患者尿液中神经毒性色氨酸代谢物的浓度增加。有报道称,自闭症患者中犬尿氨酸代谢物的靶分子 NMDAR 亚基的多态性 ,以及其他色氨酸代谢物的水平改变。
据报道,大约三分之一的自闭症患者具有高循环 5-HT 水平,这主要反映了肠道产生并储存在血小板中的 5-HT。5-HT 水平的变化可能与肠道 5-HT 代谢的变化和/或肝脏和肺部 5-HT 清除率的变化有关。然而,高血清素血症和特征性 ASD 行为症状之间的关联尚未得到一致证实。
同样,抑制 5-羟色胺再摄取转运蛋白 (SERT) 作用的选择性 5-羟色胺再摄取抑制剂 (SSRI) 对 自闭症患者并没有普遍有益的作用。这些发现表明,其中存在复杂的潜在机制。
有趣的是,对主要致病成分和生物内表型(包括血液中 5-羟色胺水平)的分析发现,与自闭症患者的免疫功能障碍有关。在同一研究人群中,免疫成分对表型变异的贡献最大;这些结果支持免疫激活对自闭症受试者血清素代谢的影响。
色氨酸影响大脑功能的 4 种不同途径
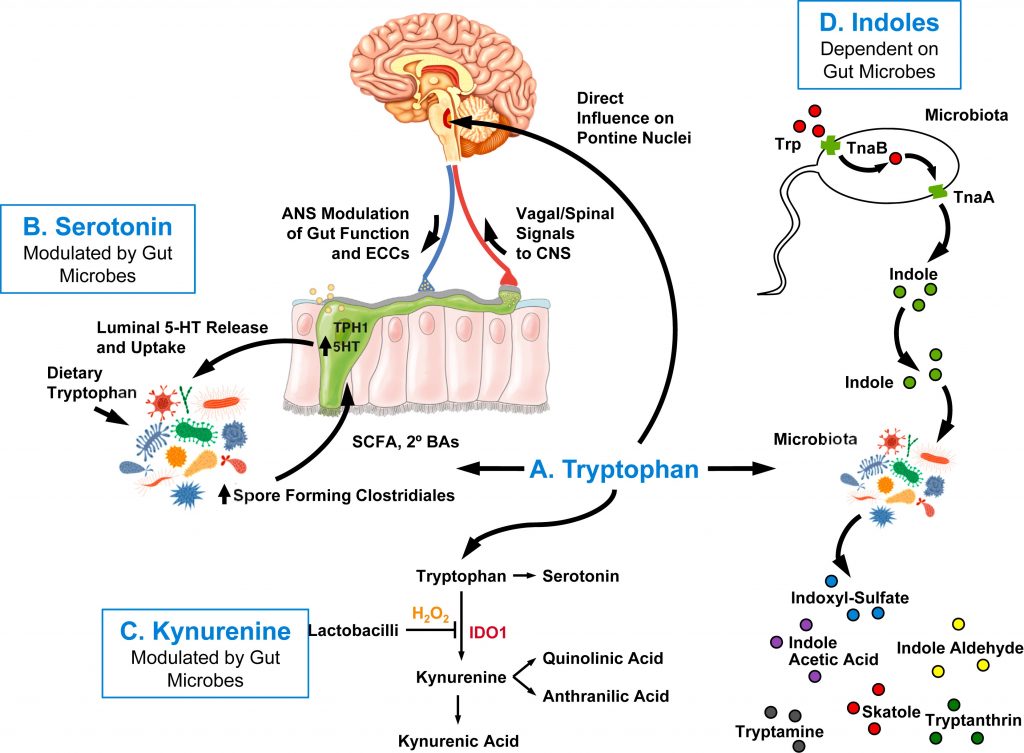
doi.org/10.1016/j.biopsych.2023.10.018
色氨酸[A]、血清素[B] 、犬尿氨酸[C]、吲哚[D]。其中三种途径依赖于肠道微生物代谢,而另一种途径中,色氨酸通过体循环到达缝核,无需微生物修饰。
自闭症与血清素代谢物研究的总结
SERT多态性与自闭症
米诺环素对色氨酸代谢的影响
当色氨酸代谢物的复杂稳态受损时,米诺环素可能对特定情况有效,从而导致犬尿氨酸代谢物的毒性作用恶化。将米诺环素用作自闭症患者的治疗选择需要谨慎选择自闭症患者。
miRNA 在神经系统中的作用
超过 60% 的人类基因受微小 RNA (miRNA) 控制,微小 RNA 是一种小型非编码 RNA,长度约为 18 到 24 个核苷酸,可作为表观遗传调控因子。miRNA 可改变大脑的可塑性和神经元的发育,其失调会导致多种神经系统疾病,包括自闭症。miRNA 已充分证实其可调控多种细胞和生理过程,包括造血、免疫反应、炎症。此外,miRNA 还受宿主-微生物群相互作用的影响,并在菌群失调和诱发炎症中发挥关键作用。
miR-146a 是自闭症中失调最严重的miRNA
一项深入研究发现,自闭症患者中存在过度表达的 miRNA,它们可能通过失调的炎症基因在神经发育受损中发挥作用。
此外,一些研究还发现,miRNA 通过与调节炎症小体表达的 3′-UTR 基因相互作用直接或间接激活炎症小体。具体而言,动物研究表明 miR-146a 的增加或减少可能是自闭症的潜在原因。
一项产后临床研究比较了自闭症和健康对照者的 miRNA,证实 miR-146a 是自闭症中失调最严重的 miRNA。
miR-146a 和 miR-155 在自闭症中的作用
另一项使用体外模型和死后人脑组织的研究也发现,早在儿童时期即可在自闭症患者脑中检测到 miR-146a 过表达。肠道菌群-宿主相互作用的变化可能诱导 miR-146a,从而促进神经炎症途径。值得注意的是,miR-146a 诱导的核因子 κB 增强了肠-脑轴的炎症信号通路。
研究表明,脆弱拟杆菌、鼠李糖乳杆菌 GG、嗜酸乳杆菌、保加利亚乳杆菌和大肠杆菌Nissle 1917与 miR-146a 表达相关。
另一项研究表明,miR-146a 对某些炎症细胞因子表达至关重要,其在大脑中的缺失会导致 miR-155整体补偿性上调。蛋白质羰基化增强和半胱氨酸硫醇水平降低是氧化应激介质激增导致神经炎症通量升高的额外指标。
miR-146a和miR-155如何与慢性炎症相关?
多项研究已将 miR-146a 和 miR-155 与慢性炎症所指的各种病理状况联系起来。一种可能的解释是,肠道毒素(如 LPS)能够穿过血脑屏障并进入体循环,可能激活 NF-kB-miRNA-146a-miRNA-155 信号通路。该通路会将来自微生物组的致病信号传递到大脑,这可能会扰乱先天免疫反应并导致神经炎症。
肠道菌群失调也可能改变 miR-155
一项研究增加了证据表明,自闭症儿童的杏仁核、额叶皮质和小脑中的 miR-155 表达增加。miRNA-155 参与细菌脂多糖对 TLR 的激活、肿瘤坏死因子-α 和 IL-6 的激活以及对树突状细胞上细胞因子信号传导抑制因子 1 的调节。这些活动,加上微生物群失调的变化,可以使 miRNA-155 成为肠脑轴和自闭症神经炎症机制中的候选角色。
早期研究发现,发酵乳杆菌、唾液乳杆菌、鼠李糖乳杆菌GG、嗜酸乳杆菌、德氏乳杆菌、双歧杆菌和大肠杆菌 Nissle 1917 等益生菌可以改变 miR-155的水平。
miR-181在自闭症中的潜在影响
研究发现自闭症患者的 miR-181 上调,预计会影响自闭症相关的神经连接蛋白 1基因。神经炎症和免疫失调是与 miR-181 家族相关的众多生理过程中的两种。
另一方面,一些研究表明肠道菌群可以调节小鼠的 miR-181。还有研究显示,鼠李糖乳杆菌和德氏乳杆菌益生菌会影响炎症疾病中 miR-181a 的表达。此外,来自肠道菌群的代谢物可能影响不同状态下的 miR-181表达。总之,这些证据强化了 miR 介导肠道微生物群可能通过自闭症中的神经炎症过程发挥作用的论点。
生酮饮食对miRNA及自闭症的影响
一项小型介入性随访研究,分析七名儿童包括在生酮饮食之前和生酮饮食 4 个月之后收集的血液和粪便样本。经过 4 个月的随访发现,生酮饮食 导致促炎细胞因子(IL-12p70 和 IL-1b)和脑源性神经营养因子 (BDNF) 的血浆水平下降。肠道微生物群的变化、肠道中丁酸激酶表达的增加以及血浆中 BDNF 相关 miRNA 水平的变化。这些队列研究结果表明,生酮饮食可能通过减少炎症、逆转肠道微生物群失调以及影响与大脑活动相关的 BDNF 通路对自闭症社交能力产生积极影响。
生酮饮食诱导的神经炎症变化的拟议间接途径
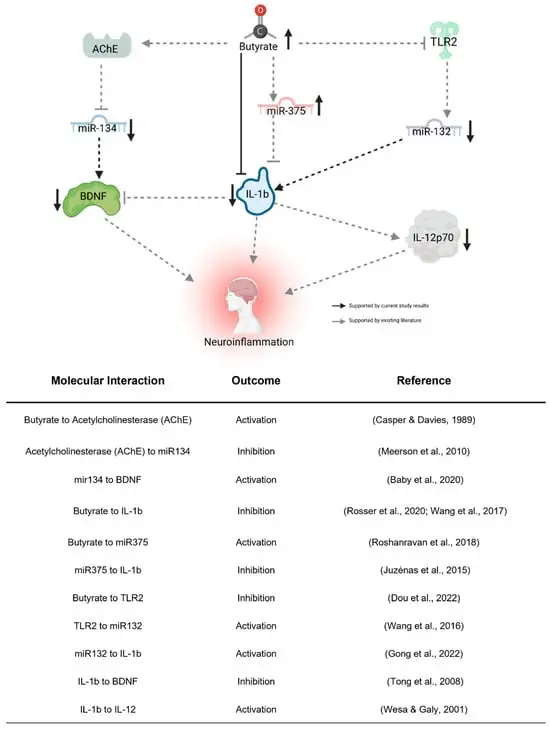
doi.org/10.3390/nu16101401
益生菌可以通过各种机制影响宿主的健康。据最近的研究,它们可以作为治疗工具,通过恢复肠道菌群的健康平衡、调节组织中的神经递质水平以及减少肠道炎症来治疗自闭症。
动物模型显示,益生菌显著改变了大鼠的社交和情感行为以及血液中 IL-6、IL-17a 和 IL-10 等细胞因子的水平。另一方面,只有少数试验从炎症调节和免疫系统调节方面评估了益生菌对自闭症的影响。
益生菌在炎症和自闭症管理中的作用试验
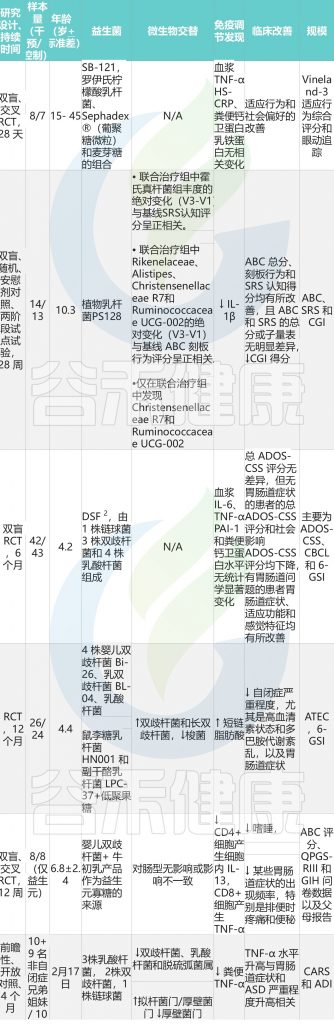
doi.org/10.1007/s10753-024-02061-y
有研究评估了婴儿双歧杆菌与牛初乳产品联合用于自闭症儿童的情况。一些患者出现胃肠道症状和异常行为的频率较低,可能是由于TNF-α和 IL-13 减少所致。
益生菌对自闭症儿童炎症标志物和症状的影响
有研究表明,粪便中TNF-α水平与自闭症严重程度之间存在很强的相关性,表明胃肠道炎症和通透性可能通过炎症途径参与自闭症。他们可以通过补充益生菌(包括乳酸杆菌、双歧杆菌和 链球菌)显著降低自闭症儿童粪便中的TNF-α水平。
在患有胃肠道问题的自闭症儿童亚组中,益生菌治疗组的一些胃肠道症状、适应性功能和感觉状况比安慰剂治疗组有较大改善。
益生菌混合物的应用
目前尚无针对自闭症核心缺陷的药物。因此,迫切需要为自闭症患者开发新的药理学方法。总体而言,这些发现表明益生菌可能是一种有前途的治疗方法,因为它们对自闭症症状有有益的影响。考虑到免疫系统功能障碍与行为异常之间存在关联,以及肠道微生物群可能通过炎症介质对 自闭症产生影响,建议在益生菌给药期间检查神经炎症变量,并确定改变这些变量的最有效配方。
无麸质和无酪蛋白饮食
研究发现,单纯的无麸质饮食对自闭症儿童的症状、行为或智力能力没有显著影响。
当无麸质饮食结合其他干预措施(如维生素、矿物质、必需脂肪酸、肉碱、硫酸镁浴、消化酶和无酪蛋白、无大豆饮食)时,观察到在非言语智力能力和自闭症症状方面有显著改善。
改良的生酮无麸质饮食
一项研究评估了补充MCT的改良生酮无麸质饮食对自闭症症状的影响,为期3个月的干预导致自闭症核心特征显著改善。
低FODMAP饮食
一项实施低FODMAP饮食的研究在自闭症儿童中未发现行为问题的显著差异。
适合自闭症谱系障碍儿童的饮食模式
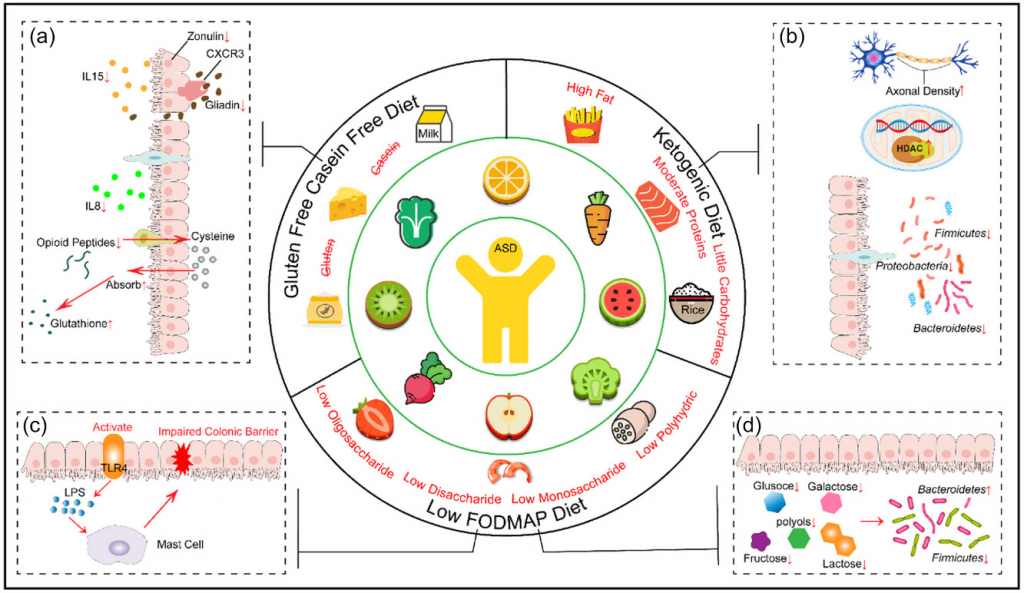
doi.org/10.1002/fft2.380
a)无麸质/无酪蛋白(GFCF)饮食可以使肠黏膜组织正常化,恢复肠上皮细胞对半胱氨酸的吸收,提高谷胱甘肽水平,增加甲基供体,防止甲基化抑制;
b)生酮饮食(KD)可以优化肠道菌群结构,降低厚壁菌门、拟杆菌门和变形菌的丰度,调节组蛋白去乙酰化酶活性,增加脑神经元轴突的密度;
c、d)低发酵寡糖-双糖-单糖-多元醇(FODMAP)饮食可以通过激活toll样受体修复受损的结肠屏障,同时调节肠道菌群以恢复肠道稳态。
必需脂肪酸补充
多项研究调查了ω-3脂肪酸补充对自闭症症状、发展年龄和营养状况的影响。综合分析显示,ω-3脂肪酸补充显著改善了干预组的刻板行为、多动、社交沟通、非言语智力能力、发展和营养状况。
肉碱
肉碱补充在自闭症患者的一年营养计划中显示出改善非言语智力能力和症状的效果。
萝卜硫素
萝卜硫素是一种存在于十字花科蔬菜中的膳食异硫氰酸酯,是一种营养保健食品。几项研究探索了萝卜硫素在自闭症治疗中的潜力,报告显示在行为和生化标志物方面有所改善。
多项研究调查了维生素补充对自闭症患者症状严重程度和生活质量的影响。
维生素A
维生素A补充对自闭症症状有显著缓解作用,特别是通过增加血清中的维生素A水平来改善社交响应性。
维生素D
维生素D补充在减少多动、减轻易怒方面有效,并可能与ω-3联合使用时进一步改善自闭症症状。
矿物质
锌的补充被认为可以增强自闭症患者的认知-运动功能。
肌肽
肌肽补充对自闭症儿童的睡眠障碍有积极作用,但对自闭症症状的严重程度影响不大。
益生元
一项针对 30 名自闭症儿童的为期 6 周的研究表明,益生元干预显著减轻了胃肠道不适并改善了排便,但对睡眠或胃肠道症状没有显著影响。研究发现,韦荣球菌科和双歧杆菌减少,拟杆菌属和普拉梭菌增加。
一项为期 12 周的小规模试点研究针对 8 名患有 自闭症和胃肠道合并症的儿童,发现益生元补充剂可显著减少异常行为(嗜睡、多动、刻板行为和易怒)并改善胃肠道症状,这可能是由于肿瘤坏死因子α 和IL-13 的产生减少所致。
doi.org/10.1016/j.rasd.2024.102352
近期研究表明,孕妇饮食中某些营养素含量高与患自闭症的风险增加有关。
在这些饮食因素中,孕妇饮食中水果和蔬菜上的农药残留可能是导致胎儿神经发育异常的重要暴露因素。
孕妇蛋白质营养不良和高咖啡因摄入量均与胎儿发育受限和后代患自闭症的风险增加有关。
每日盐的摄入量也可能是一个条件性危险因素。具体而言,盐摄入量增加对身体免疫系统和肠道微生物群有显著影响,导致肠道稳态失衡和炎症的发生,进一步通过菌-肠-脑轴导致神经发育异常。
母亲怀孕期间不良的饮食模式会增加后代患自闭症的风险。例如,高能量、高密度饮食和西式饮食均可导致自闭症发病率增加。
与这些不良饮食因素相反,怀孕期间摄入足够的维生素和 omega-3 多不饱和脂肪酸与后代自闭症发病率较低相关。
此外,增加孕妇膳食中的锌含量可以预防与自闭症相关的社交缺陷和焦虑症状。除了避免上述与孕期不良饮食有关的潜在风险因素外,患有糖尿病、肥胖或高血压等潜在风险的孕妇应特别注意每日膳食摄入量。
肥胖孕妇的饮食建议
基于人群的流行病学调查发现,母亲肥胖和怀孕期间体重大幅增加均与后代患自闭症的风险增加有关。
膳食纤维摄入不足会导致肠道中的短链脂肪酸水平异常。高膳食纤维干预和短链脂肪酸疗法可以缓解由此产生的后代的认知和社交功能障碍。高纤维饮食可能减少突触损伤和小胶质细胞缺陷,降低后代神经发育障碍风险。所有母亲无论胖瘦,都应在怀孕期间避免高脂肪饮食,以降低后代患精神疾病的风险。
动物研究表明,母鼠的高脂饮食选择性地促使雄性子代脑内免疫细胞过度消耗5-HT,从而导致神经系统异常。
孕期高脂、高糖饮食可能导致炎症介导的神经发育障碍,增加自闭症风险。肥胖女性在孕期应限制脂肪和糖摄入,增加膳食纤维摄入,以降低后代精神疾病风险。
糖尿病孕妇的饮食建议
众多研究发现母亲孕期患糖尿病与子代罹患自闭症风险增高显著相关。
短暂性高血糖可能引发持续性表观遗传改变和紧密连接蛋白表达抑制,伴随活性氧产生和超氧化物歧化酶(SOD)表达的抑制。动物研究显示,高血糖可诱导子代杏仁核中活性氧产生和SOD表达抑制,诱导自闭症样表型。
母亲糖尿病介导的氧化应激可能导致消化道功能障碍、肠道通透性增加、肠道微生物组成改变和神经元基因表达抑制,最终导致后代出现自闭症表型。母亲糖尿病可能抑制造血干细胞SOD表达、诱导炎性细胞因子,导致子代自闭症患者免疫功能紊乱。
妊娠期糖尿病女性应控制碳水化合物摄入,适量摄入具有抗糖尿病作用的食物,如洋葱和苦瓜。传统植物,如葱属、苦瓜属和荆芥属植物,含有抗糖尿病功效成分,可能有助于控制血糖。
维生素B6和维生素D的补充对降低后代罹患自闭症风险和改善糖尿病相关并发症有益。矿物质如锌和铬有助于保护糖尿病患者免于产生胰岛素抵抗。
妊娠高血压孕妇的饮食建议
妊娠期高血压与后代神经发育障碍和自闭症风险增加有关。
DASH饮食是一种有效的降低血压的饮食干预措施,通过增加粗粮、蔬菜、蛋白质、纤维素、钙和钾的摄入,并限制食盐摄入,可以显著降低血压。高质量的DASH饮食还与降低后代焦虑、行为缺陷和神经发育障碍的风险相关。
补钙和增加膳食钾的摄入也有助于预防妊娠高血压。此外,高血压的发病与肠道菌群有关,通过增加南美油藤的摄入量,可以缓解高血压。
类风湿性关节炎孕妇饮食建议
母亲类风湿性关节炎也与后代患自闭症的风险增加有关,可能通过炎症或免疫机制导致自闭症的发展。目前尚无特定的饮食模式来预防这种风险,但食用具有抗炎症或自身免疫反应的食物,如含有酚类和三萜类化合物的水果和蔬菜,可能是一种潜在的替代方案。
需要进一步研究来探索孕期饮食与菌群和炎症之间的联系,并开发有效的预防策略。
扩展阅读:深度解析 | 炎症,肠道菌群以及抗炎饮食
鉴于自闭症病理生理的复杂性和不明确性,近年来人们对炎症机制和免疫失调的作用进行了研究。自闭症中的失调途径在病因上也可以追溯到肠道微生物群失调。
这些变化可能通过释放的代谢物、BDNF的神经信号通路和神经炎症生物标志物(包括 S100B、HMGB-1、OPN、miRNA、RANTES、嗜酸细胞趋化因子和 GM-CSF)与自闭症症状和严重程度有关。
本文强调了介质作为触发机制和桥梁作用,一方面是肠道微生物群失调引起的炎症,另一方面是自闭症中枢神经系统神经炎症过程。益生菌作为恢复自闭症微生物群的适用治疗选择,表明肠道微生物群的相关性和潜在的有益影响。
然而,考虑到微生物群改变类型、神经炎症介质的巧合、干预时间长度以及自闭症年龄和症状等个体差异,评估个体肠道菌群状况以及不同益生菌及其他配方的功效对于自闭症的干预至关重要。
随着对微生物群与自闭症关系的深入理解,一个多维度的临床视角逐渐显现。我们可以通过分析微生物群的变化、相关的代谢产物、神经炎症介质以及它们与自闭症患者中枢神经系统的相互作用,在临床上描绘出自闭症的发展轨迹,这些研究的整合可能有助于我们构建一个综合的框架,用于自闭症的早期识别、干预和长期管理。
主要参考文献
Zarimeidani F, Rahmati R, Mostafavi M, Darvishi M, Khodadadi S, Mohammadi M, Shamlou F, Bakhtiyari S, Alipourfard I. Gut Microbiota and Autism Spectrum Disorder: A Neuroinflammatory Mediated Mechanism of Pathogenesis? Inflammation. 2024 Aug 2.
Yu R, Hafeez R, Ibrahim M, Alonazi WB, Li B. The complex interplay between autism spectrum disorder and gut microbiota in children: A comprehensive review. Behav Brain Res. 2024 Aug 2;473:115177.
Allan NP, Yamamoto BY, Kunihiro BP, Nunokawa CKL, Rubas NC, Wells RK, Umeda L, Phankitnirundorn K, Torres A, Peres R, Takahashi E, Maunakea AK. Ketogenic Diet Induced Shifts in the Gut Microbiome Associate with Changes to Inflammatory Cytokines and Brain-Related miRNAs in Children with Autism Spectrum Disorder. Nutrients. 2024 May 7;16(10):1401.
Li, Wentian, et al. “Dietary nutrients that potentially mitigate autism spectrum disorder and dietary recommendations for children and pregnant women.” Food Frontiers 5.3 (2024): 920-946.
Aldegheri, Luana, et al. “Impact of Human Milk Oligosaccharides and Probiotics on Gut Microbiome and Mood in Autism: A Case Report.” Microorganisms 12.8 (2024): 1625.
Ross FC, Mayer DE, Gupta A, Gill CIR, Del Rio D, Cryan JF, Lavelle A, Ross RP, Stanton C, Mayer EA. Existing and Future Strategies to Manipulate the Gut Microbiota With Diet as a Potential Adjuvant Treatment for Psychiatric Disorders. Biol Psychiatry. 2024 Feb 15;95(4):348-360.
Kim J. Autism Spectrum Disorder and Eating Problems: The Imbalance of Gut Microbiota and the Gut-Brain Axis Hypothesis. Soa Chongsonyon Chongsin Uihak. 2024 Jan 1;35(1):51-56.
Camberos-Barraza, J.; Guadrón-Llanos, A.M.; De la Herrán-Arita, A.K. The Gut Microbiome-Neuroglia Axis: Implications for Brain Health, Inflammation, and Disease. Neuroglia 2024, 5, 254-273.
Jyonouchi H. Autism spectrum disorder and a possible role of anti-inflammatory treatments: experience in the pediatric allergy/immunology clinic. Front Psychiatry. 2024 Jun 24;15:1333717.
谷禾健康

最杰出的物理学家之一的斯蒂芬·威廉·霍金想必大家都知道,以及曾经风靡全网的“冰桶挑战”,它们都与一种罕见疾病有关,那就是渐冻症。
媒体的宣传让渐冻症成为了较为“知名”罕见病之一;2000年丹麦举行的国际病友大会上正式确定6月21日为“世界渐冻人日”。但我们多数人对这种疾病的认知还不足。
什么是渐冻症?渐冻症是“肌萎缩侧索硬化症(简称ALS)”的通俗化叫法,该病一般以从四肢向中心进展,肢体肌肉逐渐消失,功能逐步丧失,直至呼吸肌消失,呼吸功能丧失,患者最后往往因呼吸衰竭而死。
渐冻症一般不会损害一个人的智力推理、视觉、听觉或味觉、嗅觉和触觉,这意味着,患者在保持清醒的状态意识到自己的情况在一步步恶化,感受自己的能力一点点退化。
渐冻症是一种罕见且严重的神经退行性疾病,会影响上下运动神经元,导致弥漫性肌肉麻痹,治疗选择较少。病因学和发病机制在很大程度上仍不清楚,但一些环境、遗传和分子因素被认为与疾病过程有关。
风险因素包括接触有毒物质、生活方式、饮食习惯、职业、体重等。研究表明,一些食物和营养素,包括红肉、钠、谷氨酸等,都可能是渐冻症的危险因素。我们知道饮食习惯、生活方式等因素都与肠道菌群状况息息相关。
新的研究确定了肠道菌群失调与神经退行性疾病(例如帕金森病、阿尔茨海默病、渐冻症)存在关联。
在这些疾病中,神经炎症越来越被认为是疾病发作和进展的驱动因素。肠道细菌在维持和调节免疫系统中起着至关重要的作用,肠道微生物组成的变化可以通过影响神经免疫相互作用、突触可塑性、髓鞘形成和骨骼肌功能来影响神经功能。
本文从渐冻症的症状、风险因素、形成原因、胃肠道和代谢功能障碍、与肠道菌群的关联和作用机理、可能的临床相关性、诊断(与其他一些神经退行性疾病的区别),带大家深入了解这一“特殊疾病”。文章的最后列举了一些现有的关于渐冻症干预方式的研究。
渐冻症
肌萎缩侧索硬化症 (ALS)
▪ 致命的神经退行性疾病
▪ 运动神经元退化,停止向肌肉发送信息
▪ 肌肉逐渐变弱、开始抽搐并萎缩
▪ 最终大脑失去启动和控制运动的能力
▪ 症状会随着时间的推移而恶化
▪ 晚期将背负巨大的心理压力和经济负担
不同的国家有不同的ALS发病频率。虽然这种疾病的世界平均发病率约为每100,000人每年1.9例。文献报道一些西方国家的ALS发病率很高,例如瑞典和苏格兰,每100,000人每年有3.8例,相反,东方国家,如中国每10万人年0.8例。
•中国渐冻症发病率相对较低
中国ALS患病率和发病率低于发达国家,并保持相对稳定的趋势。
一项研究调查研究共调查了7个省的城乡社区居民727,718人,其中城市居民占65.74%,农村居民占34.26%。
筛出肌萎缩侧索硬化患者9名,得出中国7个省肌萎缩侧索硬化总患病率为1.24/100,000。
•地区职业直接存在差异
不同省份患病率差别很大:
按区域划分:
按城乡划分:
从职业分布看:
7人职业为农民,占77.78%。
多在中年后发病,9例患者平均患病时间为50.33±13.90岁。
•医院渐冻症患者的性别占比:男性较多
在医院调查的169名肌萎缩侧索硬化患者中,117名男性,52名女性,男女性别比为2.25:1,在职业分布中,50.3%是农民,其中男性农民患者群体占比最高,共有63人,占所有医院调查患者的37.28%。
患病高峰年龄为60~69岁,男性平均患病年龄为61.43±12.66岁,女性平均患病年龄为59.98±12.76岁,男性较女性晚1~2年。医院调查中51.48%的患者没有慢性病史。
结论
(1)在中国7省的人群抽样调查中,肌萎缩侧索硬化的总患病率略低于世界其他国家和地区,农村患病率高于城市,发病时间略早于国际报道,而生存时间略低于国际报道。家族性肌萎缩侧索硬化患者较散发型发病时间早,生存时间长。
(2)人群调查和医院调查一致发现,筛查出的肌萎缩侧索硬化患者中男性占比高于女性,农民患者所占比例最高,大多数患者不伴有其他慢性病。
► 早期发病
发病主要分三种情况:一是从上肢发病;二是从腿部发病;三是从口腔肌肉发病
约 80%的ALS病例 通常表现为手臂或腿部持续无力或痉挛。
✦上肢发病最常见
上肢发病最常见,占比最高,发病过程表现为:
✦下肢发病
从下肢起病,患者可能表现为一侧肢体在走路时,脚背下垂,路面不平衡容易绊到,但没有麻木和疼感,只表现为走路越来越困难,下肢发病临床相对少见。
✦口腔肌肉发病非常罕见
第三种是患者说话不利索,此种临床最少见。疾病开始是说话不利索,感觉大舌头,容易与脑卒中相混淆,但又有区别。脑卒中患者出现的说话不利索是突发的,渐冻症则是逐渐出现说话不利索,是一个渐进过程,接着会出现吞咽困难。
早期发病主要表现为以下的特征:
注:肉跳可能是渐冻症早期比较明显的特征之一。
什么是肉跳?
肌肉出现不能控制的颤动,就是我们通常说的“肉跳”,其实是一群肌肉细胞不规则的不随意的收缩所引起的,在医学上称为肌束颤动(束颤), 肉跳可以仅发生在局部一小群肌肉,如眼皮跳动,也可以是较广泛地面部、肢体、躯干肌肉跳动。
肉跳也可分为两种情况,一种是良性的,另一种可能是渐冻症导致的。
良性“肉跳”常见的原因:运动、急性病毒感染、甲亢、手足抽搐、药物使用、焦虑等,其中,长时间运动是最主要的原因。
上述的良性“肉跳”,当然不是“渐冻症”了,但是,如果肌肉的跳动伴有肌肉的无力、萎缩,就应该高度警惕,可能的疾病包括:运动神经元病(渐冻症)、周围神经病变及少数的肌肉疾病,患者要尽快到神经内科神经肌肉疾病亚专科就诊!
发病共性
这三种发病情况都有一个共性,即感觉上没有特别明显的麻木和疼痛感。
注:上肢起病容易与颈椎病相混淆;下肢发病容易被怀疑成腰椎间盘突出;语言或吞咽困难发病时易与脑卒中相模糊。
► 中期
肌萎缩侧索硬化的病情是逐渐发展的,每个人的疾病表现不同,发展的速度也会不同,一般至少需要1年,通常不会超过5年。
随着病情的发展到了中期,可能会出现运动无力、呼吸困难等症状。
•吞咽困难
中期的肌萎缩侧索硬化症患者,由于身体内的神经系统受到了损伤,会连带咽喉周围的神经也受到一定的损害。这种情况严重时会压迫到患者的气管,就会导致患者出现吞咽困难的症状。
•肌肉无力
这种症状也是肌萎缩侧索硬化症中期患者比较常见的一种症状,这是由于患者的神经受到了损坏,导致大面积的肌肉和肌张力出现了减退的情况。这种情况严重时会使肌肉出现无力的症状,随着病情的发展,这种症状会更加明显,严重时会使患者丧失自理能力。
•呼吸受阻
当肌萎缩侧索硬化症中期的患者病情严重时,就会使患者的脑干神经元造成损害。一旦脑干神经元系统遭到破坏,就会使患者出现呼吸受阻的情况,严重时还可能会丧失说话能力,只能靠呼吸器来维持生命。
一小部分患者可出现运动系统以外的表现,如痴呆、感觉异常和膀胱直肠功能障碍等,少部分患者还可出现眼外肌运动障碍。
► 晚期
进入病程后期,除眼球活动外,全身各运动系统均受累,累及呼吸肌,出现呼吸困难、呼吸衰竭等。渐冻症晚期症状有肌肉萎缩、四肢僵硬等,具体如下:
•肌肉萎缩
肌肉萎缩明显,有肌无力、肌挛缩、四肢无力、不能动,有些患者出现舌肌萎缩、肌肉痉挛、病理反射阳性、腱反射亢进、吞咽困难、饮水呛咳,需要呼吸机辅助治疗;
•四肢僵硬
四肢僵硬:不能动弹,通过面部眼球活动来表达,称为闭锁状态,需要置胃管支持对症治疗,维持生命体征;
•体征紊乱
体征紊乱:呼吸、心跳、血压波动紊乱,以及全身电解质紊乱、内环境失衡。
渐冻症还会导致一些严重的并发症,例如营养不良、感染、压疮(褥疮)、沮丧、焦虑等问题。
肌萎缩侧索硬化(ALS)的患者可能因控制吞咽的肌肉损伤而出现营养不良和脱水。他们将食物、液体或唾液吸入肺部的风险也更高,这可能引起感染性肺炎。
注意
肌萎缩性侧索硬化症通常不会影响大脑或导致认知(思维)问题。然而,缺乏足够的营养会导致认知障碍,而这种疾病对身体造成的破坏性影响会导致抑郁。
一些患有肌萎缩性侧索硬化症的人在记忆和决策方面会存在问题,而另一些患者则会最终确诊患有额颞叶痴呆症。
值得注意的是:
一些ALS 患者的胃肠道不适其实是早于神经系统症状的。
年 龄
尽管该病可在任何年龄发作,但症状最常出现在 55 至 75 岁之间。
注:也有数据认为该病风险随着年龄增长而增长,最常见在40-65岁左右。
也有个别儿童渐冻症案例。
性 别
男性比女性更容易患肌萎缩侧索硬化。然而,随着年龄的增长,在70岁之后,男女之间的差异消失了。
生理指标
➤ 代谢类疾病
糖尿病:
糖尿病 和 ALS 之间实际的临床和病理生理学相关性尚不清楚,目前研究如下:
糖尿病对老年人 ALS 的发生具有保护作用,而对年轻受试者则相反。
预先存在的胰岛素依赖型糖尿病与较高的 ALS 风险相关(OR 5.38,95% CI 1.87-15.51)
➤ 炎症
有几条证据表明炎症是 ALS 的主要组成部分。通常,免疫细胞不会大量存在于中枢神经系统中。然而,肌萎缩侧索硬化患者的神经系统中存在免疫细胞,这些细胞会引起神经炎症(中枢神经系统炎症,包括大脑)。
其他包括氧化应激、线粒体功能障碍、谷氨酸毒性等都与引起肌萎缩侧索硬化或促进其进展有关。
这在后面章节会详细阐述。
生活方式:抽烟
吸烟和烟草烟雾暴露可能通过炎症、氧化应激和香烟烟雾中存在的重金属或其他化学物质引起的神经毒性增加 ALS 的几率。
美国的一项大型前瞻性研究(414493名男性和572736名女性参与者;617名男性ALS死亡,539名女性ALS死亡)报告称,甲醛暴露会增加ALS的风险,甲醛是香烟烟雾的一种成分。
身体创伤
头部创伤或电烧伤都可能与ALS相关。
一项研究招募了n=188名ALS患者,并从相同地区的普通人群中进行了2:1的对照。
头部创伤与ALS风险增加相关(调整后的比值比[OR]1.60 95%置信区间[CI]1.04-2.45),对症状发作前10年或更长时间发生的损伤影响更大(P=.037)。
报告严重电烧伤的患者ALS风险增加(调整后OR 2.86,95%CI 1.37-6.03),30岁后烧伤的比值比最高(OR 3.14),症状发作前10年或更长时间烧伤的比值比值比(OR 3.09).
繁重的劳动
一项早期的研究发现,繁重的劳动是一个危险因素,一项针对新英格兰建筑工人的病例对照研究(109例,253例对照)发现患病几率上升(OR = 2.9, 1.2–7.2).
注:具体关于身体活动在ALS病因中的作用的证据仍然没有定论。
种 族
白种人和非西班牙裔最有可能患上这种疾病。
研究人员正在研究环境因素的影响,例如接触有毒或传染性物质、病毒、饮食、抽烟、职业因素。
居住因素和化学品
ALS与许多化学品的接触有关,大多数支持证据都涉及农药、化肥、除草剂和杀虫剂等农业化学品。
澳大利亚报告了179对病例对照的类似发现。经常园艺(非职业接触)与ALS显著相关(OR = 6.64,95%置信区间 = 1.61–27.4)。按性别分层后,仅在男性中显示出显著的相关性(OR = 4.90,95%置信区间 = 1.11–21.7).
对60岁以下的人来说,靠近工业的住宅和污水处理厂或农场之间的联系也得到了证明。住在这些地方附近可能会接触到各种空气、水和土壤污染物。
最近,一项对66对年龄、种族和性别匹配的病例和对照进行的研究发现,职业接触杀虫剂与ALS之间的显著关联(OR = 6.50,95%置信区间 = 1.78–23.77).
重金属
重金属(铅、汞、镉等),尤其是铅,可能在ALS的发病和进展中发挥多种作用。
接触到铅或其他物质可能的场所或职业:
从事机械、绘画或建筑工作与ALS有关,其他职业包括农业、渔业、伐木和狩猎也可能与ALS有关。
在许多病例对照研究中,铅暴露与ALS有关。在新英格兰(109例和256例对照),血铅和骨铅水平升高与ALS发病率增加相关(OR = 1.9,95%置信区间 = 1.4–2.6).
在波士顿(95例和106例对照),自我报告的铅暴露与ALS相关(p = 0.02).
此外,还研究了其他金属,特别是汞和镉,但结果也不一致。重金属暴露(铅和汞)的复合测量与ALS风险增加显著相关(OR = 3.65). 虽然铅暴露与ALS相关,但尚未显示汞、镉或其他金属的关联和因果机制。
在一项小型日本研究(21例,36例对照)中,ALS患者晚期血浆和血细胞中的汞和硒水平显著低于对照组,这是由于他们的残疾,包括食用液体饮食。
在意大利进行的一项非常小的研究(9例)显示,患者的血镉水平明显高于对照组(排除了功能受损最严重的晚期患者)。
注:将不同金属的暴露分组在一起可能会导致暴露分类错误和检测关联的能力下降,这是目前和早期研究的局限性。
灰尘/纤维/烟雾
几项研究间接表明ALS职业性接触颗粒物。在某些职业环境中发现的空气尘埃、烟雾和纤维可能是空气中颗粒物的重要暴露。在许多研究中,已经对颗粒物暴露与神经系统结果进行了检查,并在几种职业环境中与ALS相关。
注:被调查的职业环境(兽医、美发师、分级和分拣师)可能会增加溶剂、金属和可能的其他介质的共暴露。没有研究直接评估暴露在环境中的颗粒物与渐冻症之间的关系。
辐射/电磁场
辐射已被认为是ALS的潜在危险因素,因为脊髓神经根病表现可能由长潜伏期的电损伤引起。
此前有三项研究报告了辐射或电磁场暴露之间的关联;有必要对此类风险进行进一步调查。
电气相关职业(OR = 1.3, 95% CI = 1.1-1.6),以及暴露于电磁场(OR = 2.3,95%置信区间 = 1.29–4.09)与ALS相关。
在美国五家大型电力公司(139905名男性)的队列死亡率研究中,ALS的死亡率与电磁场暴露工作的时间有关(RR = 2.0,95%置信区间 = 1.0–9.8) .
注意
由于以上部分实验样本量较小,再加上可能存在其他因素干扰,因此,应当谨慎关联。
大多数ALS病例都被认为是偶发性的。这意味着该病似乎是随机发生的,没有明确相关的危险因素,也没有该病的家族史。尽管散发性ALS患者的家庭成员患此病的风险增加,但总体风险很低,大多数人不会患ALS。
家族性(遗传性)ALS
大约5%到10%的ALS病例是家族性的,这意味着一个人从父母那里遗传了这种疾病。ALS的家族形式通常只需要父母一方携带致病基因。十几个基因的突变被发现会导致家族性ALS,例如C9ORF72、SOD1、SPTLC1、FUS、TARDBP、TDP-43、OPTN、TBK1等基因。
关于基因突变的作用机理将在下一章节详解。
ALS 的病理生理过程是多因素的,反映了遗传和环境因素之间复杂的相互作用。
本章节从以下几大方面来具体阐述渐冻症的发病机理:
截止目前,有几十个基因与肌萎缩侧索硬化有关,这些基因的突变约占所有家族性病例的三分之二。
1993 年至 2016 年间 ALS 的遗传图谱
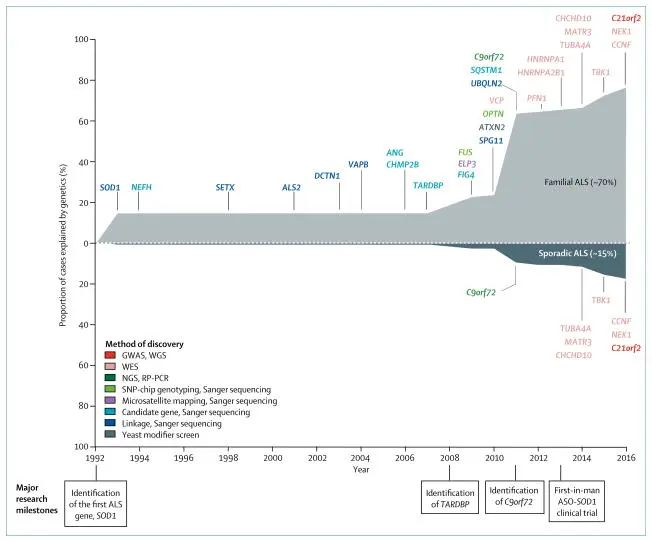
doi:10.1016/S1474-4422(17)30401-5
家族性肌萎缩侧索硬化病例约占所有肌萎缩侧索硬化病例的 10%。在这 10% 中,大约 70% 可以用遗传学来解释。
SOD1 :涉及运动神经元、神经胶质细胞和骨骼肌细胞
ALS家族病例与Cu/Zn超氧化物歧化酶(SOD1)的突变有关,这是一种保护细胞免受超氧化物自由基有害影响的关键抗氧化酶,表明SOD1功能的改变和/或异常的SOD1聚集对促进ALS发病有很大影响。
SOD1代谢的改变影响许多细胞功能,涉及不同的细胞类型(即运动神经元、神经胶质细胞和骨骼肌细胞),这些细胞类型可能相互作用以产生病理表型。
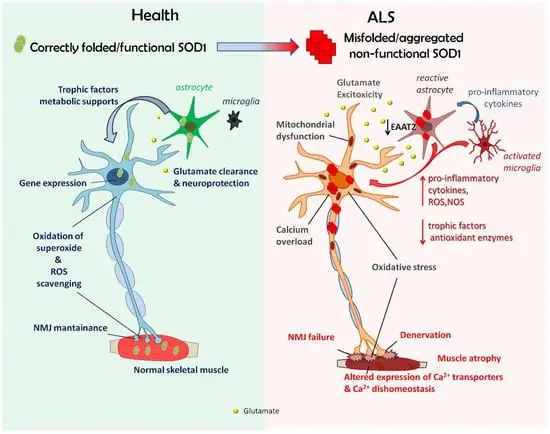
doi.org/10.3390/antiox11040614
在家族性肌萎缩侧索硬化症(FALS)和散发性肌萎缩侧索硬化症(SALS)中均发现了铜/锌超氧化物歧化酶-1(SOD1)基因,但在中国肌萎缩侧索硬化患者中研究较少,且大样本研究较少。
四川大学华西医院神经内科的 499 名 ALS 患者(487 名 SALS 和 12 名 FALS),并SOD1突变频率在SALS中为1.03%(5/487),在来自中国西南地区的FALS中为25%(3/12)。
OPTN :通过功能丧失突变引起ALS
OPTN是唯一已知的被认为通过功能丧失突变引起经典 ALS 的基因。
OPTN通常抑制 NF-κB 活性,这是先天免疫反应的一个关键组成部分,并且在其缺失或突变形式下,NF-κB 易位至细胞核并促进大量促炎基因的表达,从而增强小胶质细胞介导的神经炎症。
注:OPTN是否直接影响 NF-κB 是一个有争议的话题;然而,大多数研究都认为突变型OPTN与 NF-κB 通路失调有关,从而促进促炎反应。
TBK1 :参与多种 ALS 相关通路,如自噬和神经炎症
TBK1的突变与肌萎缩侧索硬化有关。TBK1 蛋白结合并磷酸化许多蛋白质,包括 OPTN 和 sequestosome-1/p62,并调节先天免疫和自噬。
TBK1 属于参与先天免疫信号通路的 IKK 激酶家族;具体而言,TBK1 是 1 型干扰素的诱导剂。TBK1 在自噬和线粒体自噬中也起着重要作用。
TBK1 的突变可能导致自噬受损,自噬缺陷可能导致运动神经元中蛋白质聚集体、自噬体和受损线粒体的积累。神经元损伤可能触发神经元周围细胞的先天反应,导致神经炎症,引发ALS。
在大约 1% 的家族性 ALS 患者和大约 1% 的散发性 ALS 患者中发现了TBK1突变。
TNIP1 :炎症信号传导的关键抑制因子
根据一项针对中国、欧洲和澳大利亚人群的大型全基因组关联研究,TNIP1的突变与肌萎缩侧索硬化有关。
TNIP1 在功能上与 OPTN 相关,并抑制 NF-κB 活化和肿瘤坏死因子 (TNF) 诱导的 NF-κB 依赖性基因表达。TNIP1 功能障碍或缺陷可能使健康细胞容易对其他无害的 TLR 配体暴露产生炎症反应。TNIP1还与几种免疫疾病有关,包括狼疮和牛皮癣。
SQSTM1 :损害聚集蛋白降解和自噬引起ALS
在 ALS 患者中发现了几种新的 SQSTM1突变。
SQSTM1基因编码 p62,一种调节自噬和氧化应激的主要病理蛋白(下图)。
自噬和炎性体通路在肌萎缩侧索硬化中的相互作用
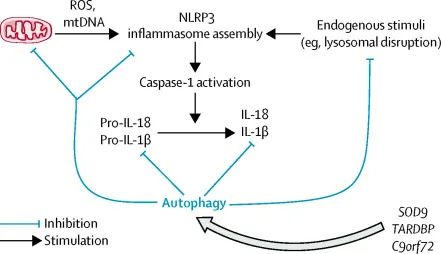
doi.org/10.1016/S1474-4422(18)30394-6
SQSTM1中的突变会改变 p62 的功能,并通过损害聚集蛋白降解和自噬来促进 ALS 的病理生理学。
VCP : VCP突变会影响肌肉、骨骼和大脑
VCP基因的突变与家族性和散发性肌萎缩侧索硬化有关。
VCP 是自噬和泛素化-蛋白酶体途径(另一种降解和处理受损、错误折叠和过量蛋白质的细胞机制)的重要组成部分。VCP中的突变会损害整体蛋白质降解并导致 TDP-43 沉积,从而导致包涵体肌病、Paget 病、额颞叶痴呆或 ALS. VCP突变是 1%-2% 的家族性ALS 病例的原因。
CX3CR1 :突变会损害小胶质细胞的神经保护反应
CX3CR1 是小胶质细胞上的一种特异性受体,可与 fractalkine(一种从运动神经元释放的蛋白质)结合,从而促进神经保护反应。受体 CX3CR1 的突变会损害 fractalkine 结合并导致 ALS 患者的生存时间缩短,但不会增加患病风险。
CX3CL1/CX3CR1 通讯系统具有抗炎和神经保护作用,在维持自噬活性中起重要作用。
然而,CX3CR1是一种 ALS 疾病修饰基因;CX3CR1的多态性会损害先天免疫小胶质细胞的神经保护反应,为其在 ALS 疾病发病机制中对神经炎症的作用提供证据。
这些突变基因提供了免疫系统诱导的炎症机制参与 ALS 发病机制的直接证据。此外,这些突变基因表明自噬抑制了 NLRP3 炎症小体的激活,并且这些免疫相关基因的突变阻止了炎症小体介导的激活的生理抑制,因此激活了炎症通路(IL-1β 和 IL-18 ) 并有助于 ALS 发病机制。
TARDBP :突变对细胞造成损害
ARDBP的突变与 ALS 和额颞叶痴呆的家族病例有关。
TARDBP基因提供了构建一种称为TDP-43的蛋白质的指令,这种蛋白质通常位于细胞核中,并参与蛋白质生产的各个步骤。TARDBP基因突变导致TDP-43蛋白在细胞核外形成聚集体(团块),对细胞造成损害。
约97%的ALS患者中发现了TDP-43聚集体,包括TARDBP基因没有突变的人。
C9orf72 :与神经变性、炎症、免疫相互作用有关
多项研究探索了C9orf72介导的疾病的致病机制。C9ORF72 与神经变性、炎症和我们与环境的免疫相互作用的调节有关。
C9orf72 突变难以发现的原因之一是该突变位于C9orf72 基因的一个内含子中。
在 ALS 患者的C9orf72中记录了小胶质细胞炎症活动的显着增加,并且与更快的疾病进展相关。
注:激活的小胶质细胞是 ALS/FTD 病理学的普遍特征,C9orf72在骨髓细胞中具有重要作用。
三种主要的疾病机制:C9orf72蛋白的功能丧失和C9orf73重复RNA或由重复相关的非ATG翻译产生的二肽重复蛋白的功能毒性增加。
注:NEK1 和 C21orf2 相互作用,参与微管组装、DNA 损伤反应和修复以及线粒体功能。
MATR3 :突变与神经肌肉功能退化相关
MATR3 是一种 RNA 和 DNA 结合蛋白,可与TDP-43 相互作用,TDP-43 是一种与ALS和额颞叶痴呆相关的疾病蛋白。
在具有MATR3突变的 ALS 患者中,上运动神经元和下运动神经元受到影响,生存期为 2-12 年。
过表达MATR3 蛋白的转基因小鼠出现后肢麻痹和肌肉萎缩,表明神经肌肉功能对 MATR3 水平敏感。
2014 年,MATR3 的四个突变(p.S85C、p.F115C、p.P154S 和 p.T622A)通过外显子组测序在四个单独患有 ALS 或同时患有 ALS 和痴呆症的欧洲血统家族中被鉴定出来。自 2014 年以来,已描述了 11 种其他变异,主要发生在散发性 ALS 患者中。
CCNF :突变导致异常的蛋白停滞
CCNF是Skp1-cullin-F-box E3泛素连接酶复合物的底物识别成分,该复合物负责用泛素标记蛋白质,并通过泛素蛋白酶系统标记其降解。
CCNF的突变可能导致异常的蛋白停滞,而TDP43蛋白病可能会加剧这种情况。因此,提高蛋白质清除率或减少泛素化的疗法可能是可行的治疗方法。
其他相对较为罕见的突变基因还包括:
CCHHD10、TUBA4A等。
与肌萎缩侧索硬化相关的基因之间的相互作用
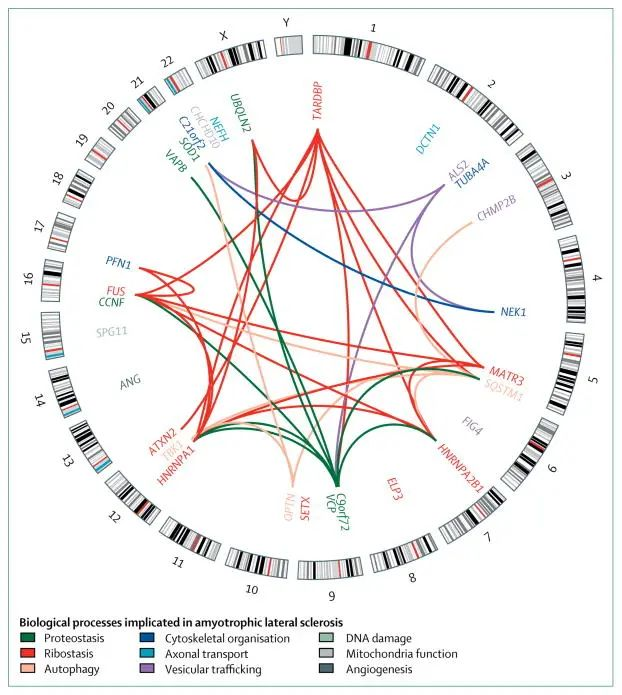
10.1016/S1474-4422(17)30401-5
外圈是核型表意文字,显示24条染色体(22条常染色体,X染色体,Y染色体);内圈显示每个基因的位置。基因之间的联系代表蛋白质或基因水平的相互作用。交互数据是从交互数据集的生物通用存储库中获得的。黑线表示细胞遗传学条带模式。与基因或相互作用有关的生物过程用颜色表示。
越来越多的证据表明整个 ALS 的免疫系统都存在异常。免疫细胞被激活并导致 ALS 周围和中枢神经系统中的慢性促炎微环境。
ALS的促炎症是全身性的,外周免疫系统(PIS)和中枢免疫系统(CIS)之间存在串扰。迄今为止,串扰还没有得到很好的定义。
随着对 ALS 的深入了解,研究人员已经意识到这两个系统持续互动和交流的重要性。CNS驻留免疫细胞和外周免疫细胞通过免疫分子相互作用。
功能失调的中枢神经系统屏障,包括血脑屏障(BBB)和血脊髓屏障(BSCB),为“串扰”打开了大门,也受到炎症环境的调节。因此,慢性全身炎症导致MN死亡、运动神经元轴突受损和神经肌肉接头功能障碍。
PNS和CNS之间的免疫串扰示意图
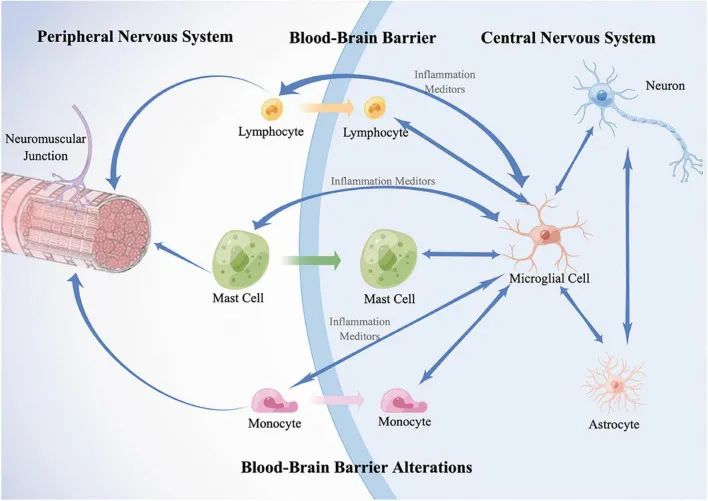
doi: 10.3389/fnagi.2022.890958
双头箭头表示两个细胞的通信。蓝色单箭头表示细胞释放炎症介质并影响其目标。橙色、绿色和紫色箭头分别表示外周细胞浸润到中枢神经系统。
在中枢神经系统中,常驻免疫细胞小胶质细胞被激活并通过释放促炎或抗炎物质(例如细胞因子)并与浸润的外周免疫细胞相互作用来介导神经炎症;星形胶质细胞控制小胶质细胞的活化、迁移和增殖。
在 PNS 中,常驻免疫细胞(包括 T 淋巴细胞、肥大细胞和单核细胞)被激活并沿外周运动神经和神经肌肉接头浸润。同时,它们渗入由小胶质细胞衍生的炎症介质触发的中枢神经系统。
此外,CNS 屏障功能障碍,包括血脑屏障 (BBB) 和血脊髓屏障 (BSCB),有助于外周免疫细胞浸润并加速有害相互作用。因此,跨越两个系统的炎症反应会导致运动神经元 (MN) 死亡、MN 轴突损伤和神经肌肉接头功能障碍。
▋ ALS中的中枢神经系统普遍存在炎症
神经胶质细胞,包括小胶质细胞和星形胶质细胞,触发神经炎症反应,与浸润的外周免疫细胞相互作用,最终诱导或加速 ALS 中枢神经系统的神经元死亡。
小胶质细胞 是中枢神经系统的常驻先天免疫细胞,通过释放包括细胞因子和趋化因子在内的免疫分子来介导神经炎症。小胶质细胞激活是异质的,取决于病理损伤的性质。
越来越多的研究证明,小胶质细胞在疾病发作时表现出抗炎表型并保护运动神经元,而终末期小胶质细胞转变为促炎表型并加重 ALS 中运动神经元的神经变性。
活化的小胶质细胞通过分泌活性氧和促炎细胞因子(包括 IL-1β、IL-6 和 TNFα)促进细胞毒性。
星形胶质细胞 是大脑中最常见的胶质细胞,维持中枢神经系统屏障,分泌神经营养和神经保护因子,调节神经递质摄取和循环,促进神经发生。研究已经确定星形胶质细胞作为免疫调节剂的作用,因为它们可以控制小胶质细胞的激活、迁移和增殖。
因此,星形胶质细胞和小胶质细胞释放的炎性细胞因子可能促进谷氨酸兴奋性毒性,从而将神经炎症和兴奋性毒性细胞死亡联系起来。
当达到临界阈值时,反应性星形胶质细胞和小胶质细胞可能引发不可逆的病理过程,随后导致 ALS 患者运动神经元的非细胞自主死亡。
在大脑和其他神经组织中,细胞因子在神经元、星形胶质细胞和小胶质细胞之间进行交流。
ALS 中主要病理生理事件的示意图
编辑
炎症通路失调不仅存在于 10% 的具有阳性家族史的 ALS 患者中,而且存在于 90% 的散发性 ALS 患者中。
散发性 ALS 患者的 CNS 反应性小胶质细胞和星形胶质细胞炎症也有所增加,并激活了浸润 CNS 的外周单核细胞和淋巴细胞。在散发性 ALS 患者中引发这种免疫失调的原因尚不清楚。炎症细胞因子 IL-6 由转基因 mSOD1 小鼠和 ALS 患者中活化的巨噬细胞和小胶质细胞分泌。
▋ ALS 外周的免疫激活
ALS 中存在外周免疫异常。一般来说,慢性外周免疫反应在 ALS 中是促炎性的。淋巴细胞、单核细胞(包括巨噬细胞)、中性粒细胞、自然杀伤 (NK) 细胞和肥大细胞 (MC) 是外周常驻免疫细胞。发现 ALS 患者血液中的总白细胞计数升高。
在外周血中大多数研究表明,神经保护性 CD4 T 淋巴细胞水平降低,而 ALS 患者的 CD4 T 淋巴细胞亚群,调节性 T 细胞 (Tregs) 减少和功能障碍。在 ALS 中,外周血中细胞毒性 CD8 T 淋巴细胞的数量存在争议。NK T 淋巴细胞被认为对 ALS 有害,并且在 ALS 患者的外周血中增加。
B 淋巴细胞仅在 ALS 中被讨论,研究表明它们在 ALS 的发病机制中起补充作用。据报道,单核细胞比例发生了变化,ALS 患者的循环单核细胞优先分化为促炎表型。外周血中的中性粒细胞数量增加,并显示与疾病进展显着相关。
NK 细胞是先天免疫细胞并介导细胞毒性。ALS 患者血液中的 NK 细胞水平升高,可能具有致病性。
在 ALS 小鼠中显示循环肥大细胞数量增加,而在 ALS 患者中缺乏证据。
远端轴索病变是 ALS 公认的病理特征 。在 ALS 中观察到活化的肥大细胞、巨噬细胞和中性粒细胞沿着坐骨神经和骨骼肌中退化的运动轴突募集。
外周免疫细胞也可渗入中枢神经系统,对运动神经元和神经胶质细胞产生影响,下文将对此进行讨论。外周免疫细胞在其预后作用方面的讨论越来越多。在这方面,随着技术和认识的发展,研究人员已经转向探索特定人群或单个骨髓亚群来对患者进行分类或监测。
▋ ALS中枢神经系统屏障的改变
CNS 屏障由一层内皮细胞形成,由内皮间紧密连接 (TJ)、粘附蛋白和细胞质连接。称为基底层 (BL) 的基底膜被周细胞和星形胶质细胞末端包裹,支持内皮细胞和相关的周细胞。
它们构成了 CNS 的物理屏障,而 CNS 的生化屏障是由各种运输系统赋予的。
在 ALS 患者和小鼠的早期观察到脑屏障的改变,表明损伤可能有助于发病机制。
这些变化总结如下:
CNS 障碍是中枢免疫系统和外周免疫系统之间基于体液的交流的中心点。更好地了解 CNS 屏障的完整性或功能是如何改变的,可能会提供终止 ALS 中有害串扰的方法。
★ 血脑屏障 (BBB) 和血脊髓屏障:维持CNS稳态
血脑屏障 (BBB) 和血脊髓屏障 (BSCB) 是基于毛细血管的屏障,分别将大脑和脊髓组织与外周血液循环分开。这两个屏障在形态上相似,因为它们都位于无孔毛细血管内皮细胞内,毛细血管内皮细胞通过紧密连接和粘附分子密封在一起。
虽然 BSCB 具有比 BBB 更高的连接渗透性,但这两个屏障严格调节营养物质、内源性化学物质、代谢物和异生素进出中枢神经系统 (CNS) 的细胞旁和跨细胞交换。 因此,它们在维持 CNS 微环境的稳态方面发挥着重要作用,这对于正常的神经元功能至关重要。
此外,这两种屏障都高度表达各种外源性外排传输泵,这些泵是 ATP 结合盒 (ABC) 转运蛋白超家族的成员。
★ 转运蛋白在两个屏障的表达水平的变化,改变大脑和脊髓组织中的药物浓度
P-糖蛋白 (P-gp)、乳腺癌耐药蛋白 (BCRP) 和多药耐药相关蛋白 2 (MRP2) 等多种外源性转运蛋白的管腔毛细管表达,是向大脑和脊髓输送药物的主要障碍脐带,因为它们的集中外排活性将药物从屏障内皮质膜或胞质溶胶隔室泵回血液以进行后续清除。
注:P-gp:P-糖蛋白是一个比较常见的保护细胞免受外来有害分子入侵的分子泵,它位于细胞膜上,不停的“搜查”着外来的疏水分子,就如同一个守护细胞的“保安”。
这些转运蛋白在两个屏障的表达水平的变化可以改变大脑和脊髓组织中的药物浓度。因此,了解 BBB 和 BSCB 的转运蛋白活动对于更准确地预测 CNS 中的药物药代动力学和药效学至关重要。
★ 利鲁唑在 CNS 中的全部治疗功效受这些转运蛋白的限制
在一些 ALS 患者的 CNS 屏障处诱导 P-gp 是可能的,并且可能解释了确定有效的 ALS 药物治疗的困难。此外,目前 FDA 批准的唯一用于 ALS 管理的药物利鲁唑被建议作为 P-gp 和BCRP底物。
由于利鲁唑是两种 ABC 异源外排转运蛋白 P-gp 和 BCRP 的底物,利鲁唑在 CNS 中的全部治疗功效可能会受到 BBB 和 BSCB 上的这些外排转运蛋白的限制。
最近在体内使用 ALS 小鼠模型的研究表明,在疾病进展的晚期,P-gp 和 BCRP 转运活性和表达在 CNS 屏障中被诱导。这些诱导可能会进一步限制利鲁唑在中枢神经系统中的治疗功效。
ALS 诱导的 P-gp 上调可进一步限制利鲁唑穿过 CNS 屏障的渗透性,并降低其在神经元靶位点的浓度,从而降低其治疗效果。在这种情况下,应在预期在 CNS 屏障处诱导 P-gp 的患者的整个 ALS 进展过程中,研究作为 P-gp 底物的 CNS 药物疗法的剂量或治疗窗口的适当调整。
总之,防止 P-gp 诱导或底物相互作用的药理学干预可用于提高在 CNS 屏障处显示 P-gp 诱导的 CNS 疾病(例如 ALS)的治疗效果。
★ ALS 物理屏障完整性的破坏
多项研究发现 ALS 患者 CNS 屏障的超微结构发生改变,包括微血管内皮细胞肿胀和细胞质空泡化、周细胞覆盖率降低以及 ALS 患者脊髓中星形胶质细胞末端足突与内皮细胞的分离。
在脑干、颈椎和腰椎脊髓中也观察到超微结构改变,但在 ALS 小鼠的运动皮层中没有观察到。已注意到这些改变发生在疾病的早期阶段,并随着疾病的进展而恶化。
TJ 由多种蛋白质形成,例如 zonula occludens-1 (ZO-1) 和 occludin,并阻止溶质的细胞旁运动。在 ALS 患者和小鼠的脊髓中观察到 TJ 和粘附蛋白(如 ZO-1 和 occludin)的表达显着降低。尽管粘附蛋白发生了变化,但在电镜下发现 ALS 患者死后脊髓中 TJ 的形态结构保存完好。尽管保留了 TJ 的形态结构,但 CNS 中内源性蛋白质的检测表明 CNS 屏障的细胞旁通透性和渗漏性增加。
ALS 患者和小鼠中均观察到基底层( BL )增厚:
内皮细胞的脱离使 BL 暴露于 BL 内的血浆蛋白、纤维蛋白和胶原蛋白 IV,然后积累,导致 BL 增厚。由于在 ALS 小鼠的早期阶段检测到 BL 异常,这些发现表明它可能作为补偿机制或修复过程发生。
基于这些发现,超微结构异常和 TJs 粘附蛋白表达减少可能导致连接完整性受损和细胞旁通透性增加,从而允许外周物质和细胞进入中枢神经系统。因此,它促进了外周免疫系统 和 中枢免疫系统 的交流,并加速了全身性炎症反应。
★ 生化中枢神经系统屏障的功能调节
生化中枢神经系统屏障由各种运输系统赋予,例如 ATP 结合盒 (ABC) 蛋白。它们可以有效地从内皮细胞中排除各种内源性和外源性毒素,以维持细胞稳态。研究最深入的 ABC 蛋白 P-糖蛋白 (P-gp) 是在 CNS 屏障上表达的脂溶性小分子的主要外排转运蛋白。
P-gp 的表达和活性在 ALS 患者和小鼠中均上调。 肿瘤坏死因子 α (TNF-α) 和生长因子-β 1(TGF-β1) 显示可上调小鼠和大鼠中 P-gp 的表达和活性。 由于 ALS 患者和小鼠体内 TNF-α 和 TGF-β1 水平升高,它们与 P-gp 的过度表达有关。
此外,星形胶质细胞也被怀疑是依赖于 ALS 基因型的 ALS 中 P-gp 表达增加的原因。例如,共培养的 ALS 相关突变体 SOD1 星形胶质细胞通过分泌 TNF-α、趋化因子和活性氧 (ROS) 等可溶性因子影响附近内皮细胞中的 P-gp。
同时,ALS 相关突变体 C9orf72 星形胶质细胞已被证明对内皮 P-gp 表达没有影响。此外,另一种外排转运蛋白乳腺癌耐药蛋白 (BRCP) 的表达在 ALS 患者和小鼠中上调。
一般来说,CNS 屏障中 P-gp 和 BRCP 丰度和活性的增加表明生化 CNS 屏障界面功能的调节,这可能最终影响 ALS 的发展。
▋ 屏障细胞分泌神经免疫相关物质
屏障细胞,包括内皮细胞、周细胞和星形胶质细胞,分泌神经免疫相关物质以响应外周或中枢免疫细胞的免疫刺激。脑内皮细胞 (BEC) 可以组成型分泌白细胞介素 6 (IL-6)、前列腺素和一氧化氮以响应不同的刺激。
由于 ALS 中周细胞数量减少,其炎症介导作用也可能导致 ALS 病理。与其他屏障细胞相比,周细胞对 TNF-α 最敏感,可以释放 IL-6 和巨噬细胞炎症蛋白-1α(MIP-1α,也称为 CCL3)作为反应。
炎症反应性周细胞通过释放 IL-8 和基质金属蛋白酶 9 (MMP-9) 支持中性粒细胞迁移,从而导致神经炎症的后续发展。
星形胶质细胞在 ALS 的免疫反应中被激活。
一方面,星形胶质细胞通过多种炎症因子控制小胶质细胞的激活、迁移和增殖,并分泌介导单核细胞迁移的 MCP-1 等蛋白质,从而放大 CNS 中的神经炎症。
另一方面,屏障上反应性星形胶质细胞释放的一氧化氮、血管内皮生长因子(VEGF)、胶质细胞源性神经营养因子(GDNF)和MM-9等生化物质调节TJ蛋白的表达和增殖内皮细胞,从而影响 CNS 屏障的完整性和渗透性。
因此,屏障细胞不仅可以将信息从一侧传递到另一侧(如 外周免疫系统 到 中枢神经系统),还参与介导炎症微环境。
在 ALS 中,受损的运动神经元与胶质细胞相互作用,它们释放一定水平的细胞因子和趋化因子,随后募集先天性和适应性免疫细胞浸润 CNS 以促进炎症。
促炎信号从中枢免疫系统传播到 外周免疫系统,从外周免疫系统传播到中枢免疫系统,从而促成了 ALS 的全身炎症环境。
▋ ALS中的细胞因子和趋化因子
许多细胞因子和趋化因子,例如 IL-1、IL-6、TNF 和 CC 趋化因子配体 2 (CCL2),已被证明可以穿过 中枢神经系统屏障,而这些屏障介导它们的运输、渗透和摄取。
一方面,由于免疫细胞的激活,ALS中细胞因子和趋化因子的水平发生显着变化(见表)
另一方面,促炎介质水平升高会增加 CNS 屏障的通透性,直接作用于它们的受体以改变驻留细胞的功能,诱导免疫细胞运输,并加剧屏障破坏和神经炎症。
细胞因子和趋化因子在 ALS 中的主要作用

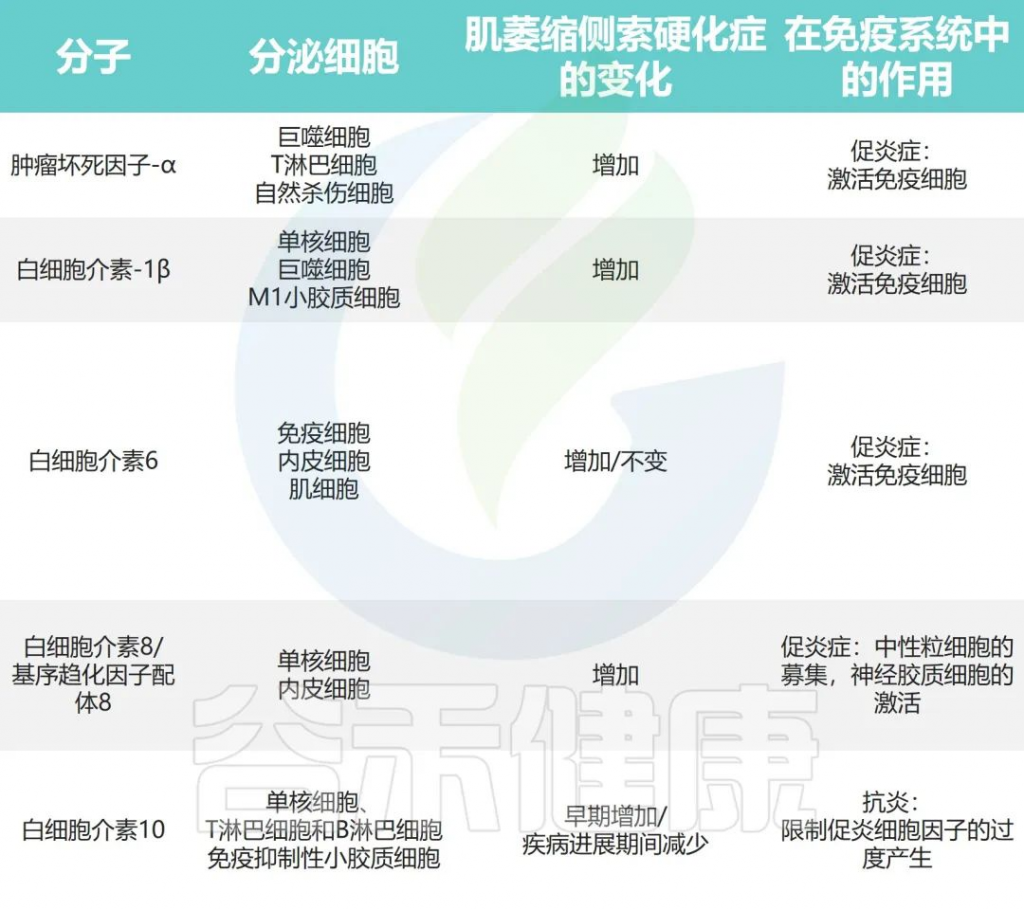
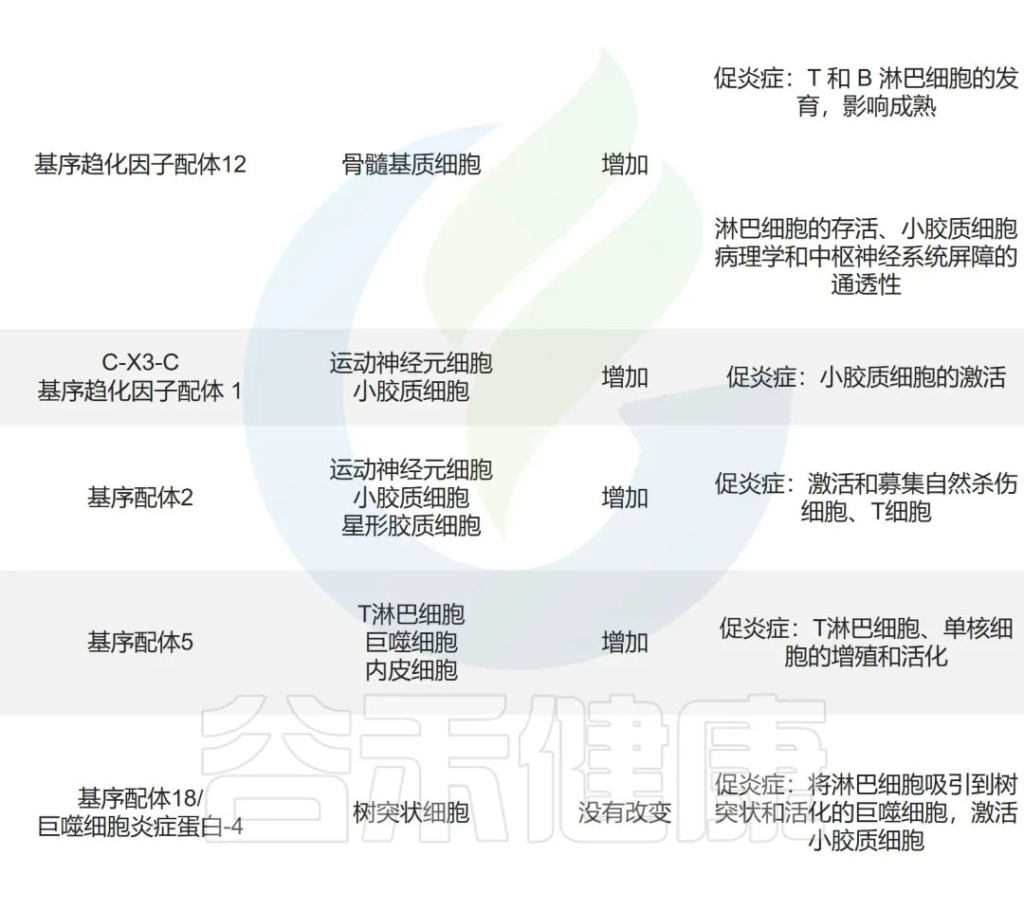
doi: 10.3389/fnagi.2022.890958
▋ 周围免疫细胞的中枢神经系统浸润
越来越多的证据表明,许多外周血白细胞首先在外周免疫系统中被激活,然后在 ALS 中迁移到中枢免疫系统。
白细胞向中枢神经系统运输的调节是多方面的,取决于白细胞的激活状态、内皮界面的 TJ 复合物以及 中枢神经系统和 PNS 中的炎症微环境。
由于外周白细胞可以很容易地监测,并且鞘内或脑室内与多种风险相关,因此在 ALS 治疗中靶向外周白细胞可能是可行的。因此,需要更好地了解外周免疫细胞如何渗入中枢神经系统。
★ T 淋巴细胞
ALS 中 T 淋巴细胞的浸润是众所周知的。趋化因子和趋化因子受体对于实质浸润至关重要。慢性炎症环境诱导内皮细胞表面白细胞粘附的上调,内皮细胞与 T 淋巴细胞上表达的 CD6 结合,使其进入脑实质。此外,T 淋巴细胞衍生的 TNF-α 和 IL-17 诱导免疫细胞和运动神经元分泌 MM-9,促进 T 淋巴细胞浸润到 CNS。
大量证据强调了 T 细胞亚群之间的差异及其在 ALS 中进入 CNS 的特定机制。例如,内皮细胞分泌 CXCL9、CXCL10、CXCL11、CCL19、CCL21 和 MCP-1 等趋化因子,通过 CNS 屏障募集 CD4 + T 细胞。对神经炎症具有抑制作用的 Treg 细胞被激活并通过CCL5/CCR5 和 CCL6/CCR6 机制募集到 CNS,以抑制疾病早期小胶质细胞的激活。
CD8 + T 细胞显示出强烈的浸润,并通过在活化的小胶质细胞和受损的运动神经元中表达的 MHC-I诱导运动神经元死亡。
★ 肥大细胞
先前研究的结果表明,肥大细胞在 PNS 的早期退化中发挥作用,并对神经元损伤产生连锁反应。后来的研究证实了肥大细胞在 ALS 患者脊髓中的浸润。MC 上受体的表达受激活的小胶质细胞释放的 IL-6、CCL5 和 TNF-α 的影响,从而调节肥大细胞激活和 CNS 募集。
此外,肥大细胞可以向 TJs 和细胞外基质成分释放蛋白酶,从而影响 BBB 的通透性和完整性,导致 肥大细胞侵入 CNS。
★ 单核细胞
外周单核细胞可以很容易地取样。越来越多的证据表明,浸润性单核细胞来源的巨噬细胞是中枢神经系统小胶质细胞的同系物,并通过 ALS 中受损的血脑屏障进入中枢神经系统。人血单核细胞在体外很容易获得并且很容易分化成巨噬细胞。
有限数量的活化外周单核细胞浸润中枢神经系统, 并影响 ALS 中的神经炎症。先前的研究表明 ALS 中单核细胞的比例发生了变化。在快速进展的 ALS 患者中,外周循环中的单核细胞通常处于促炎状态。最近,外周单核细胞已被证明可以浸润 CNS,这与 ALS 中运动神经元存活率的提高有关,但浸润可能是有限的。
此外,单核细胞衍生的巨噬细胞在 ALS 中被激活。激活的巨噬细胞通过在疾病期间错误折叠蛋白质清除来发挥神经保护功能。巨噬细胞也显示出对中枢神经系统的有限浸润。
中枢神经系统中单核细胞的积累是由于浸润细胞的增殖,而不是积累的循环单核细胞的浸润。
★ Treg 细胞
Treg 是免疫耐受的细胞介质,具有抑制各种类型免疫反应的能力。Tregs 的主动抑制在控制自身抗原反应性 T 淋巴细胞和诱导体内外周耐受中起着关键作用。
Tregs 可防止激活的 Tresps 的激活和效应功能。
在从患有快速进展的 ALS 患者分离出的血液白细胞中,Tregs 的数量及其 FOXP3 蛋白表达均减少,并且这些水平与疾病进展率呈负相关。
FOXP3、TGF-β、IL-4 和 GATA-3(一种 Th2 转录因子)的 mRNA 水平在快速进展的患者中降低,并与进展率呈负相关;FOXP3 和 GATA3 都是进展率的准确指标。
在缓慢和快速进展的患者之间没有发现 IL-10、TBX21(Th1 转录因子)或 IFN-γ 表达的差异。
在表观遗传学上,Treg 特异性去甲基化区域的甲基化百分比在 ALS Treg 中更高。在体外扩增后,ALS Tregs 恢复了对对照 Tregs 水平的抑制能力,这表明扩增的 Tregs 的自体被动转移可能提供一种新的细胞疗法来减缓疾病进展。
★ 其他免疫细胞:中性粒细胞、自然杀伤细胞
很少有研究讨论中性粒细胞和 NK 细胞在神经免疫串扰中的作用。然而,考虑到外周血中中性粒细胞和 NK 细胞数量的增加与疾病进展之间存在显着相关性,以及它们在先天免疫反应中的作用, 它被认为以复杂的方式影响中枢神经系统的神经炎症。
例如,终末期 ALS 小鼠在脊髓中显示出高 NK 细胞频率。
NK 细胞衍生的 IFN-γ 诱导小胶质细胞向炎症表型发展,调节 CCL2 的释放,CCL2 是一种趋化因子,可调节来自运动神经元的 CNS 浸润,并损害 Treg 细胞迁移。
小 结
上文充分讨论了涉及中枢免疫细胞和外周免疫细胞、中枢神经系统屏障、细胞因子和趋化因子的串扰。所有这些元素的功能障碍导致运动神经元的非纤维素性死亡。这些交流在ALS的全身炎症环境中起着重要作用。
中枢神经系统屏障在串扰中起着至关重要的作用。值得注意的是,神经炎症的影响是双重的,因为它在疾病期间发挥神经毒性或神经保护作用。
使免疫串扰和稳态正常化而不是抑制炎症,可能为今后的研究提供潜在的治疗目标和方向。
与健康人相比,肌萎缩侧索硬化症(ALS) 患者的肠道微生物组发生了变化,其中包括潜在保护性菌群和其他具有促炎的菌群失衡。
编辑
最初进行的研究的特点是小规模和精选的患者队列,甚至只有不到 10 个个体,提供了相对一致的数据来支持 ALS 中的生态失调。
涉及肌萎缩侧索硬化的微生物群的系统发育分布
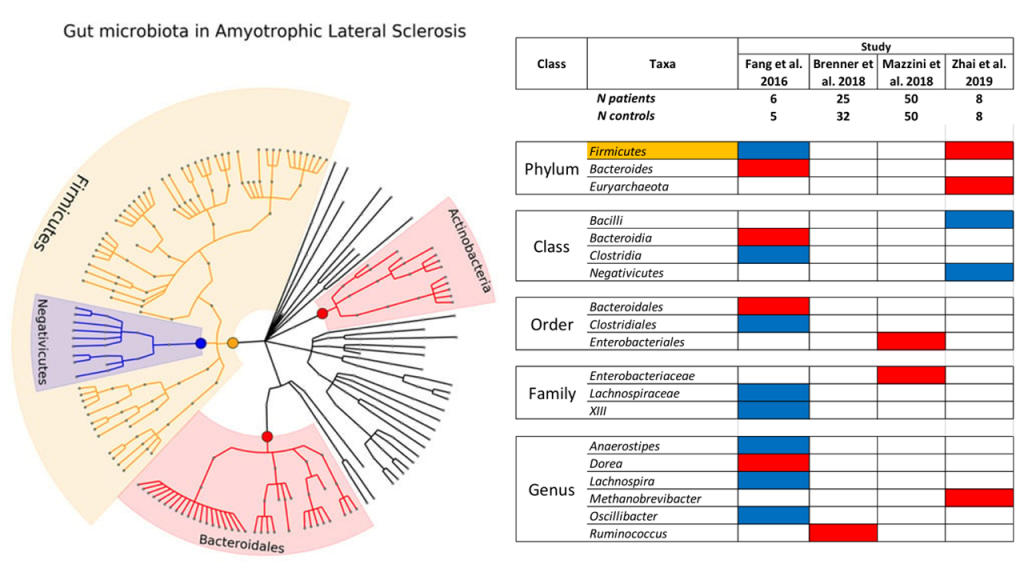

doi.org/10.3390/ijms232213665
以上数据来自六项关于 ALS 的研究,共涉及 159 名 ALS 患者和165名健康对照者。橙色表示不一致的结果,蓝色表示相对丰度下降,红色表示相对丰度增加。
综合一些研究报道,ALS 患者的肠道菌群主要变化如下:
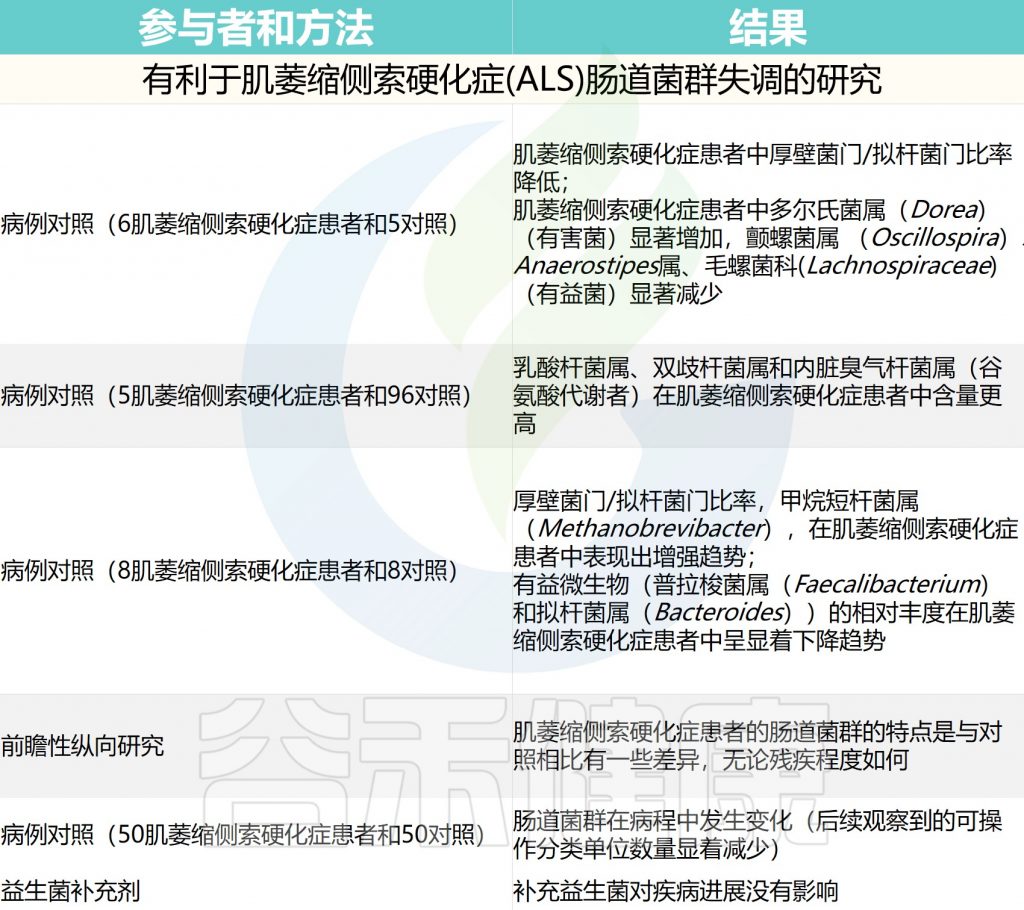


Letizia Mazzin et al., Amyotrophic Lateral Sclerosis.2021 Jul 25
在2020年发表了一项关于ALS微生物群组成的前瞻性纵向研究,表明ALS患者的肠道菌群与对照组相比有所不同,与残疾程度无关。此外,他们观察到蓝细菌的增加(蓝细菌以神经毒性作用著称)。患者中蓝细菌门的成员明显高于对照组,支持蓝细菌在ALS发病机制中发挥基础作用的假设。
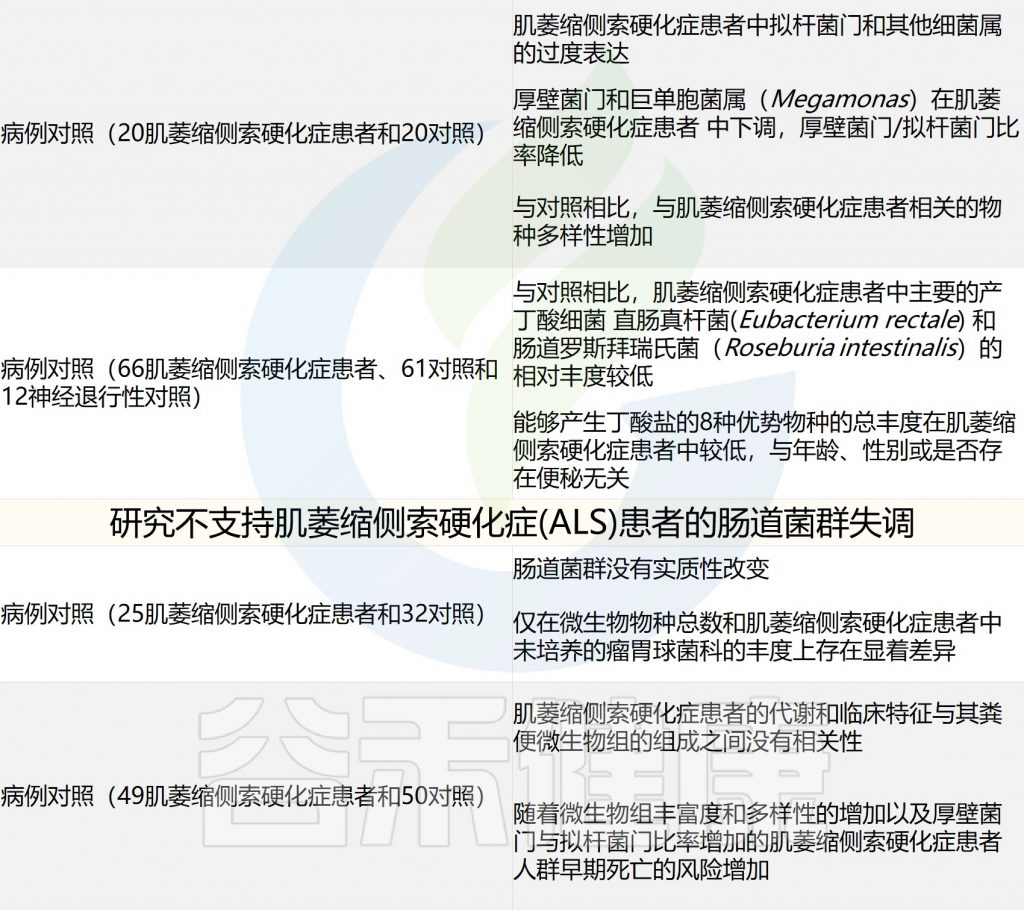
有研究发现,在ALS患者中,谷氨酸代谢细菌更丰富,主要丁酸盐产生细菌更低,这与谷禾渐冻症菌群分析结果相吻合。
现有的关于ALS的肠道菌群研究整理如下:

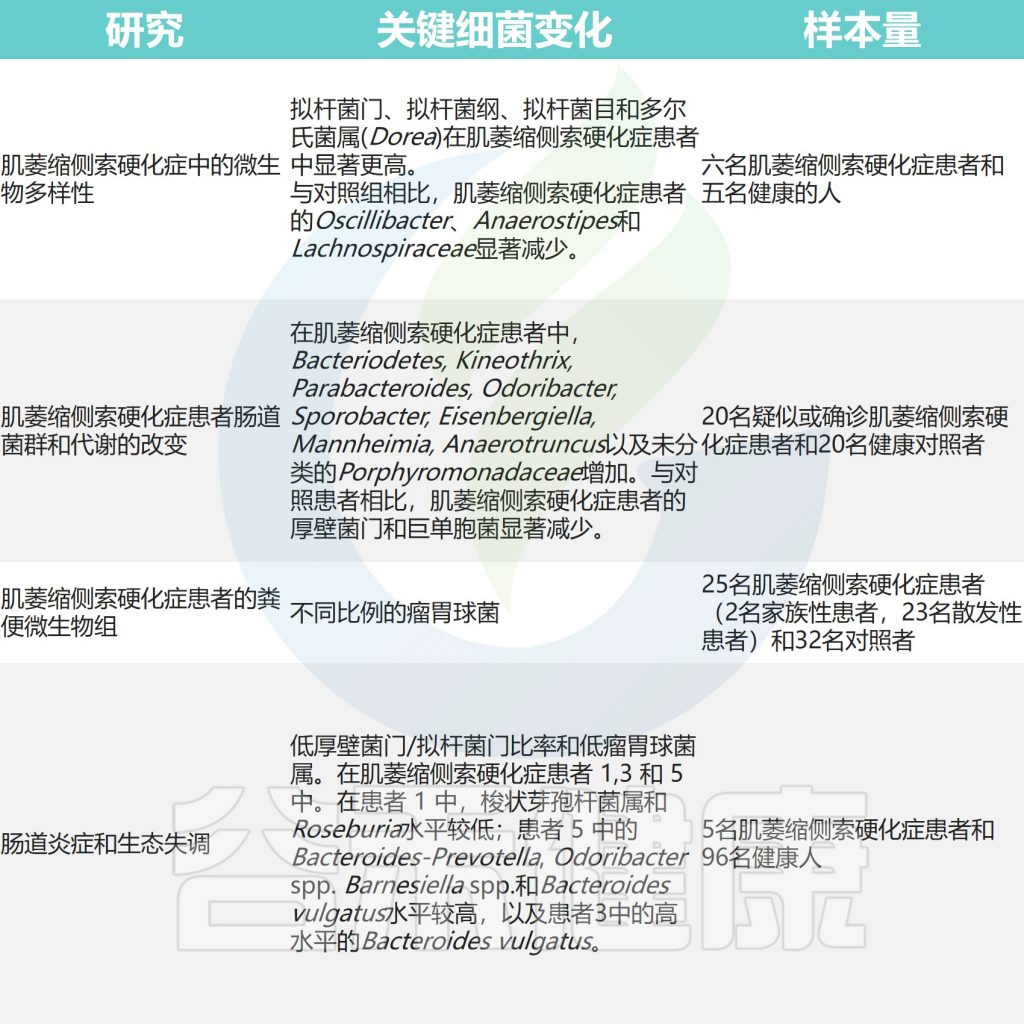
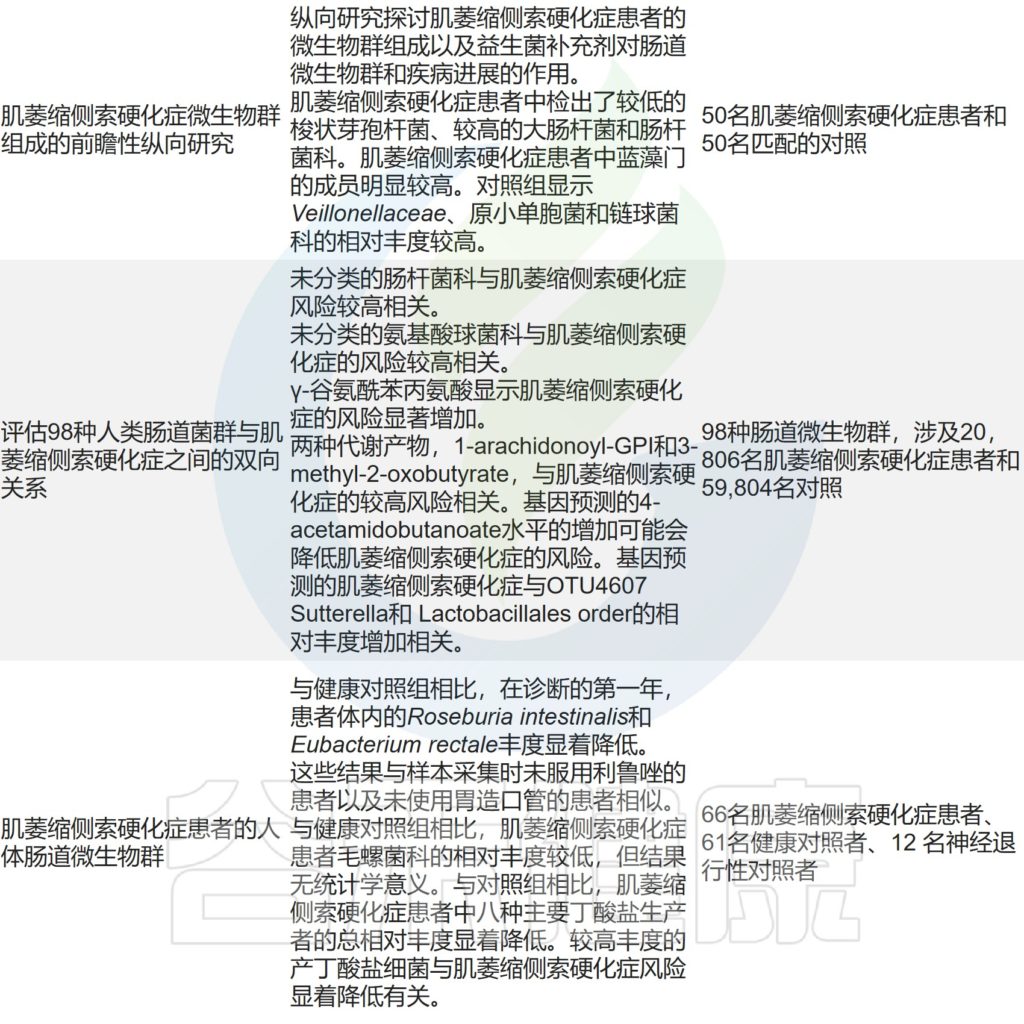
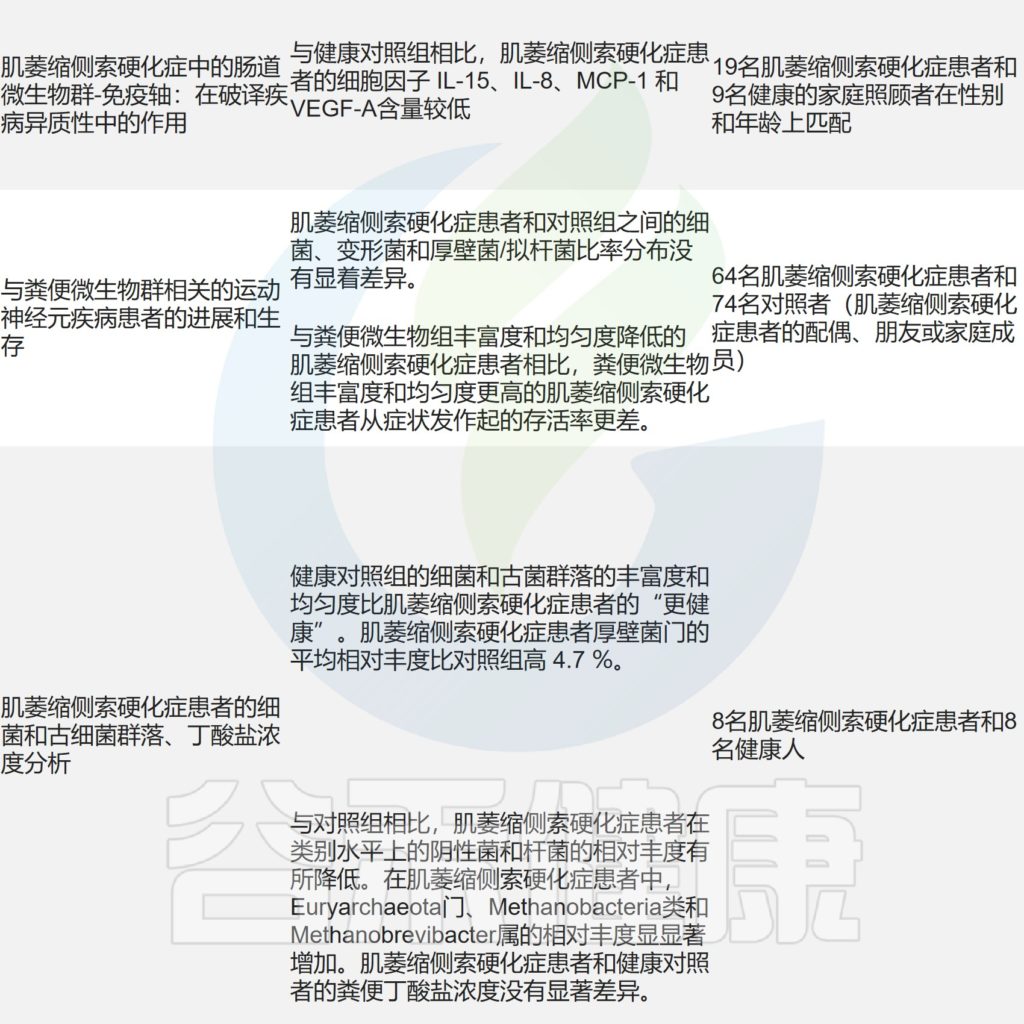
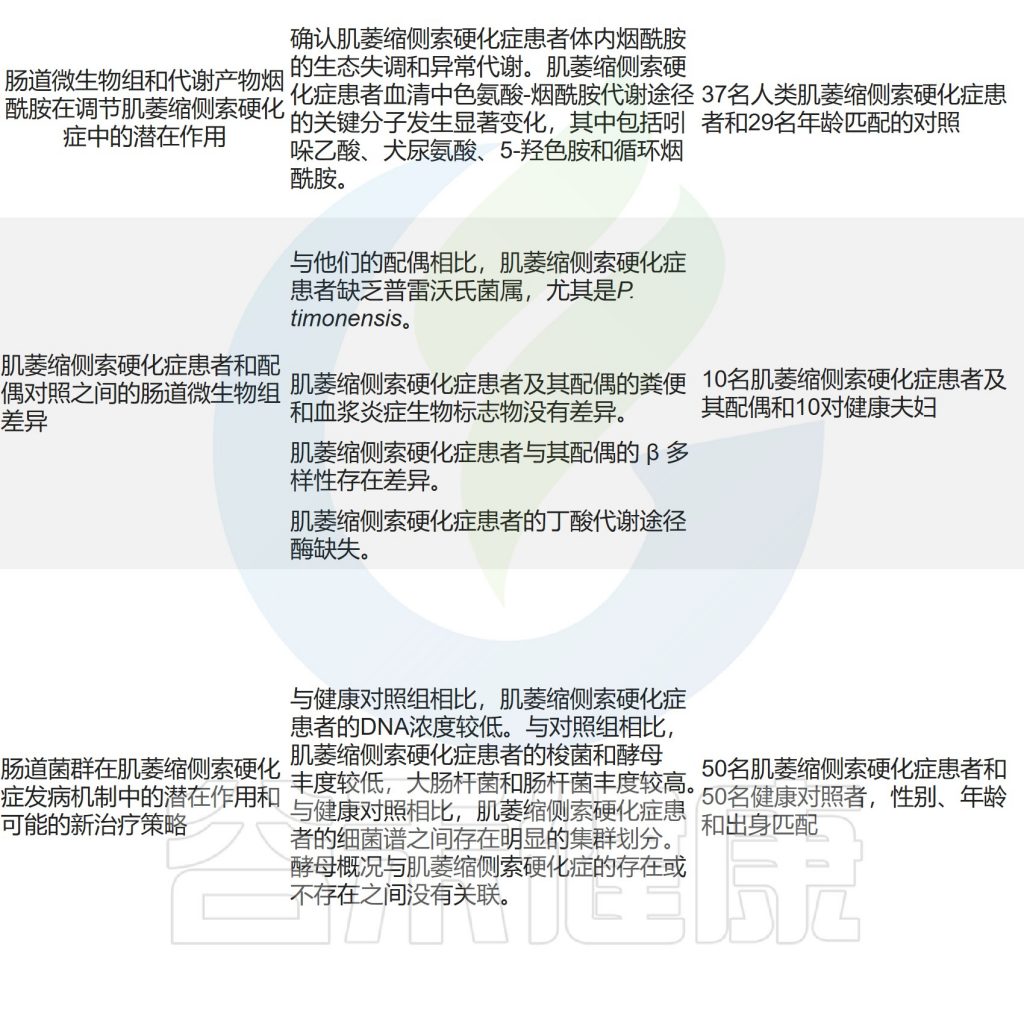

doi: 10.3389/fcimb.2022.839526
在这些研究中,促炎性生态失调的原因与微生物失衡有关,微生物失衡可能损害肠上皮屏障并促进免疫/炎症反应,从而导致改变并在 ALS 发病机制中发挥作用。
▋ ALS患者和配偶对照之间的肠道菌群差异
一项研究中,研究人员探讨了与ALS相关的微生物组组成的差异。
比较了ALS患者(n = 10) 其配偶(n = 10). 发现与配偶相比,ALS患者的肠道微生物群多样性更高,且普雷沃氏菌属缺乏。健康夫妇没有表现出这些差异。
ALS患者及其配偶的粪便和血浆炎症标志物相似。对微生物酶的预测分析显示,ALS患者在几种代谢途径中的活性降低,包括碳代谢、丁酸盐代谢以及涉及组氨酸激酶和反应调节剂的系统。
ALS患者的肠道菌群与配偶对照组相比存在差异。表明改变肠道菌群,例如通过改善普雷沃氏菌属缺陷和/或改变丁酸盐代谢,可能对ALS治疗具有转化价值。
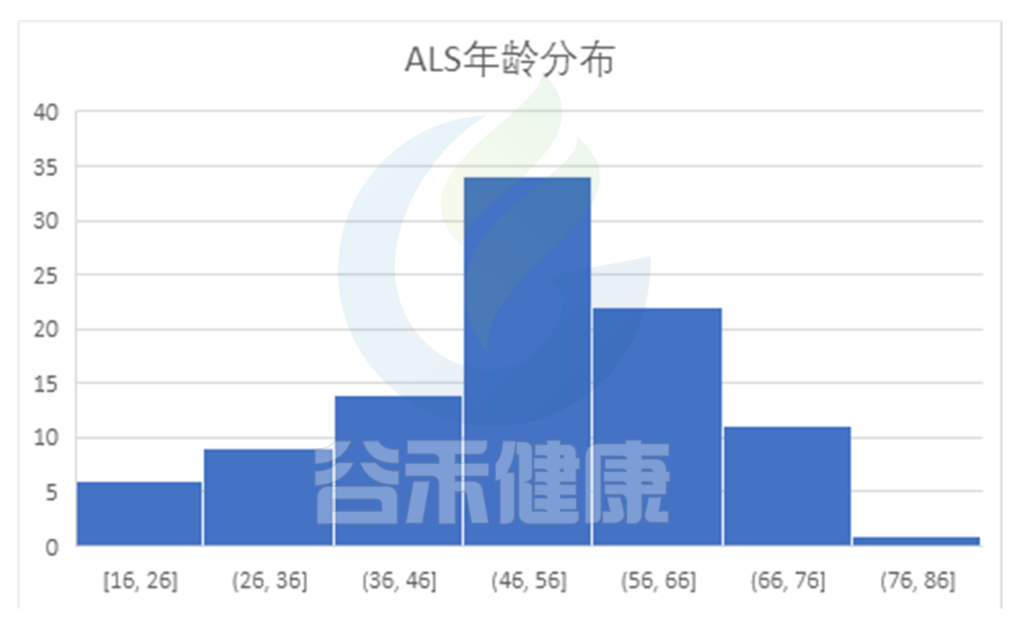
使用109例渐冻症患者,相匹配的对照共442例
其中性别比例:
按年龄划分:
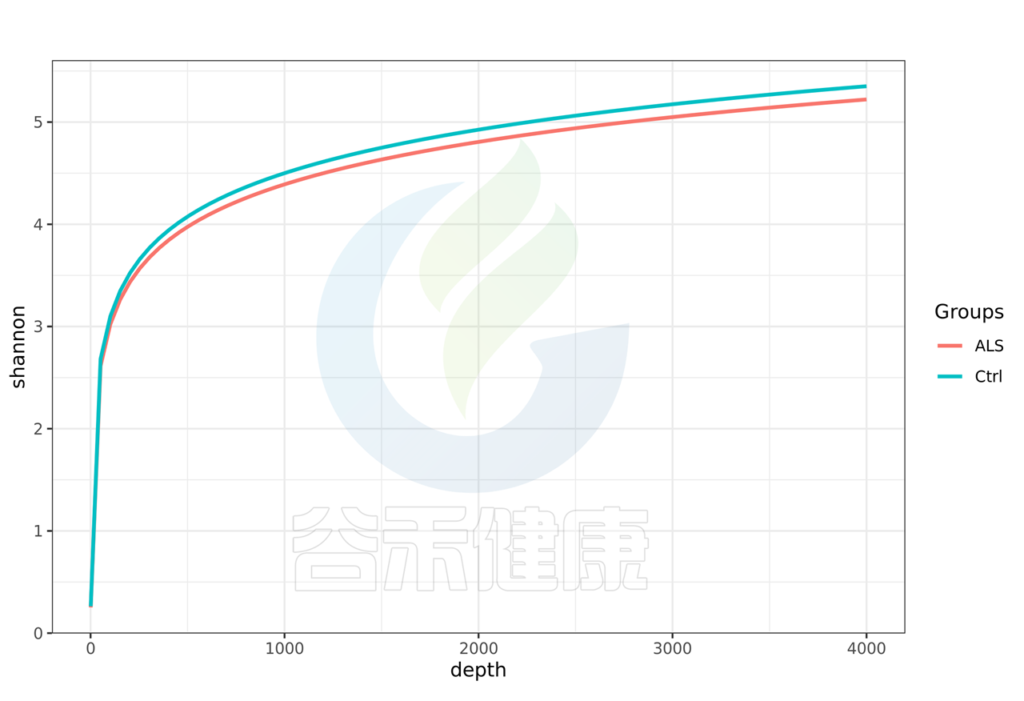
多样性上渐冻症人群稍低于对照人群,但差异不显著。
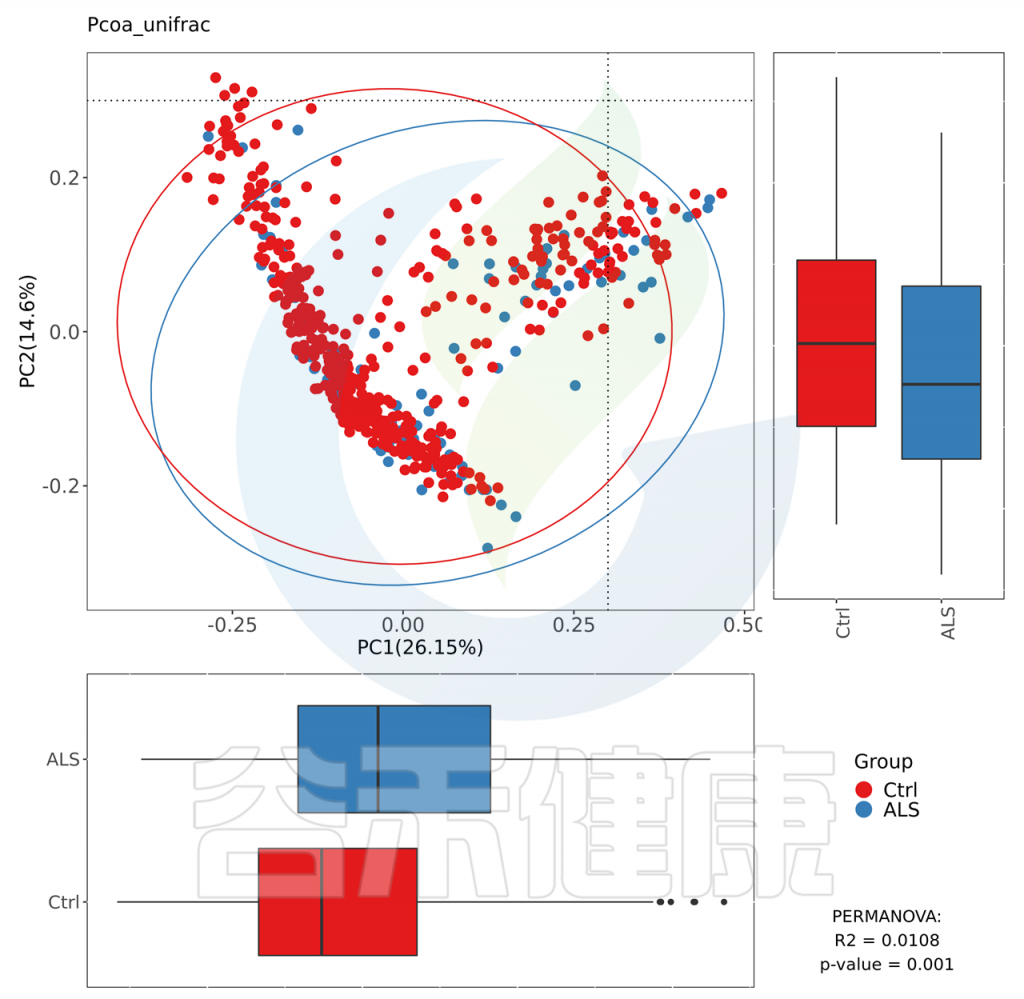
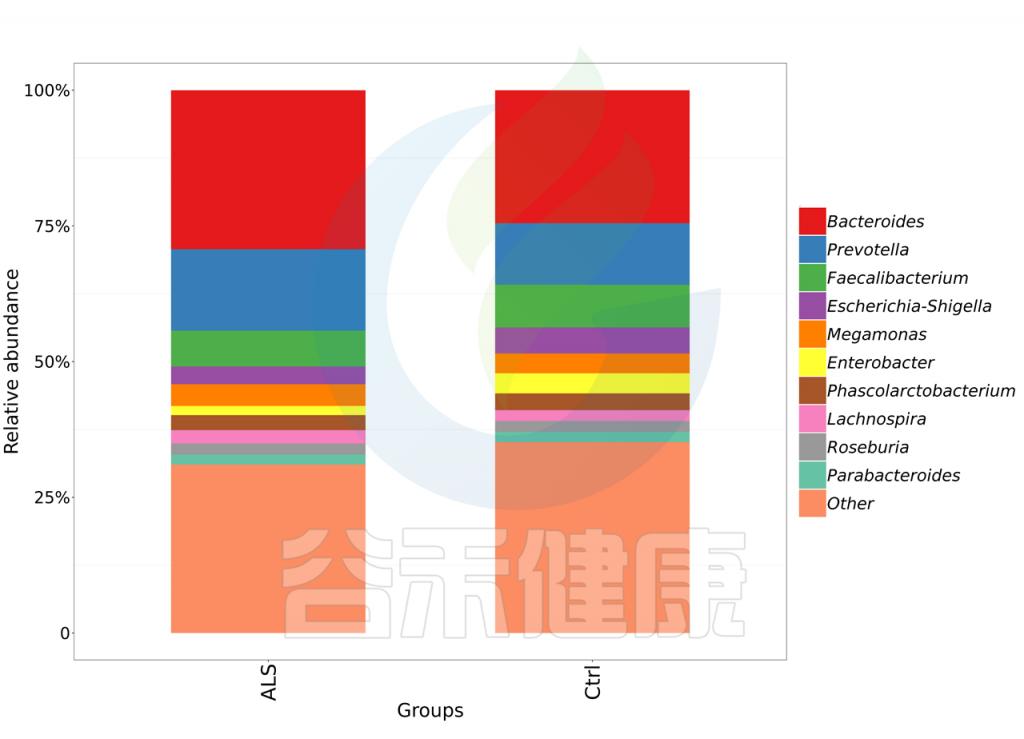
菌群特征总体存在一定差异:

来看具体差异:
渐冻症人群拟杆菌显著高于对照;
Faecalibacterium则低于对照人群;
此外萨特氏菌属Sutterella渐冻症人群显著高于对照人群。
拟杆菌属(bacteroides)——重要的基石菌属,存在于人类肠道中,它们与人类具有共生关系。它们有助于分解食物并产生身体所需的营养和能量。然而,当拟杆菌进入到除胃肠区域以外的身体部位,可引起或加剧脓肿等感染,具体详见:
Faecalibacterium 是丁酸的重要生产者之一,具有抗炎作用,维持细菌酶的活性,保护消化系统免受肠道病原体的侵害。关于Faecalibacterium 的介绍详见:
肠道核心菌属——普拉梭菌(F. Prausnitzii),预防炎症的下一代益生菌
Sutterella 是变形菌门最丰富的菌之一,是一种厌氧或微需氧的、耐胆汁的菌,在人类胃肠道中具有轻度促炎能力,详见:

除了高丰度菌属外,双歧杆菌属和丁酸球菌属,渐冻症人群也低于对照:
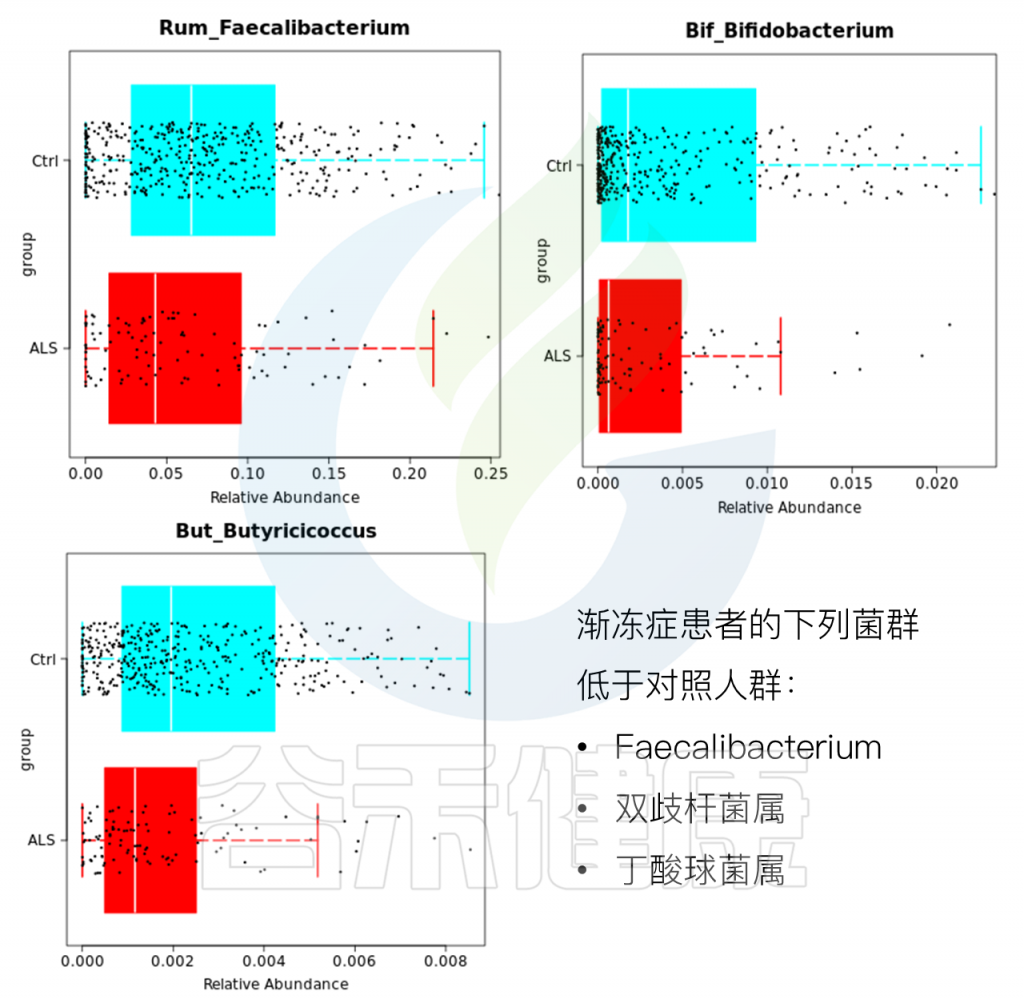

基于谷禾检测结果,渐冻症患者的有害菌丰度显著高于对照人群,益生菌和消化效率要低于对照人群。
此外维生素B1,维生素B12以及维生素C都显著低于对照人群,相对的维生素D水平要高于对照人群。
(来源:谷禾菌群数据库)
微生物群可能直接或间接的方式影响中枢神经系统和神经元健康:
■ 直接通过产生神经活性代谢产物和毒素
■ 间接通过调节免疫反应、饮食化合物或药物代谢
肠道微生物及其代谢产物可以直接刺激肠嗜铬细胞产生几种神经肽(如,肽YY、神经肽Y、胆囊收缩素)或神经递质(如,血清素),它们可以扩散到血液中,到达大脑,并影响中枢神经系统功能。
肠上皮调节特定细菌产物(如短链脂肪酸、维生素或神经递质)进入血液的易位,进而通过循环系统传播到中枢神经系统。通过这种方式,循环微生物群衍生的代谢产物、神经肽和神经递质可以进入中枢神经系统并直接影响其神经生物学。
ALS的微生物代谢产物调节
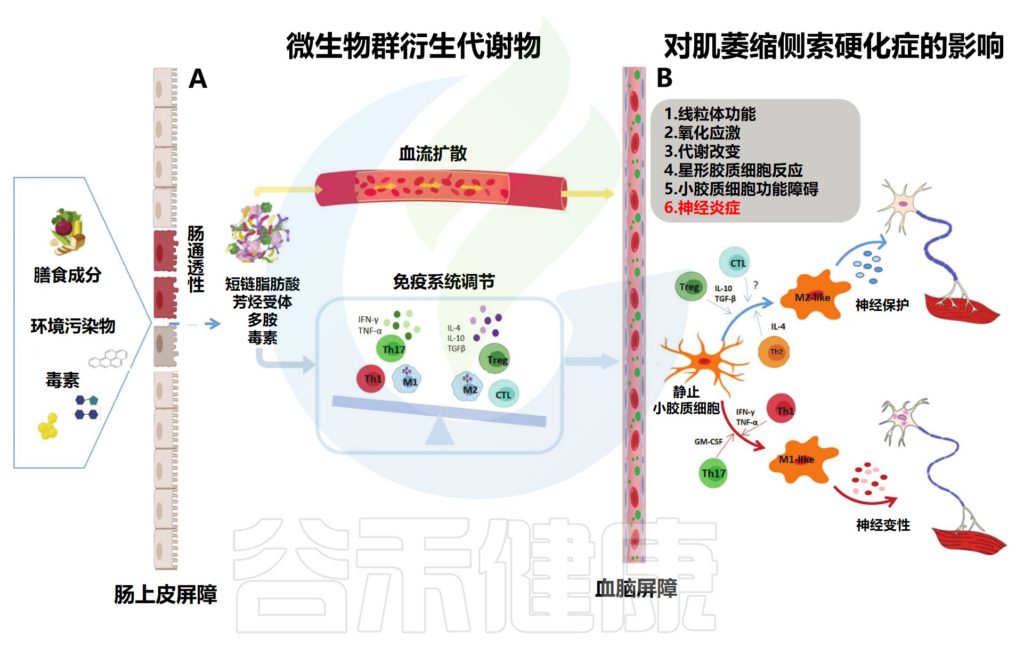
Letizia Mazzin et al., Amyotrophic Lateral Sclerosis.2021 Jul 25
A) 受损IEB或肠道细菌产生的毒素和神经活性代谢产物可以跨越血脑屏障,扩散到全身循环,并影响ALS发病机制;或者,微生物代谢终产物可能通过免疫系统调节间接影响中枢神经系统。
B) 细菌衍生的代谢产物可以改变能量稳态,促进氧化应激,并诱导线粒体功能障碍和神经炎症。特别是,外周免疫T淋巴细胞调节小胶质细胞的命运,从而调节神经元的退化或存活。
产生Th1、Th17和GM-CSF的CD4+T淋巴细胞有利于小胶质细胞M1样神经毒性表型;
Th2、Treg和某些CD8+T细胞类型可能有助于促进神经支持性M2样表型。
A.muciniphila给药可以改善小鼠的疾病进程,他们应用了非靶向血清代谢组学分析来确定可能的介体。有趣的是,A.muciniphila治疗的小鼠显示出NAM的血清水平升高,其直接给药显示出有益的效果,可能是通过调节线粒体功能和氧化应激途径。
注:NAM是能量转导、信号通路和抗氧化机制所需的辅酶的前体,可能在ALS相关的神经变性中受损。
与健康受试者相比,ALS患者的血清和脑脊液中的NAM浓度较低,粪便中NAM合成细菌基因的表达也较低,这支持了肠道菌群可以产生化合物,这些化合物能够渗透血脑屏障并影响神经元功能。
肠道菌群代谢物影响神经元健康
肠道内微生物代谢产物可通过中枢神经系统炎症直接或间接影响神经元健康。
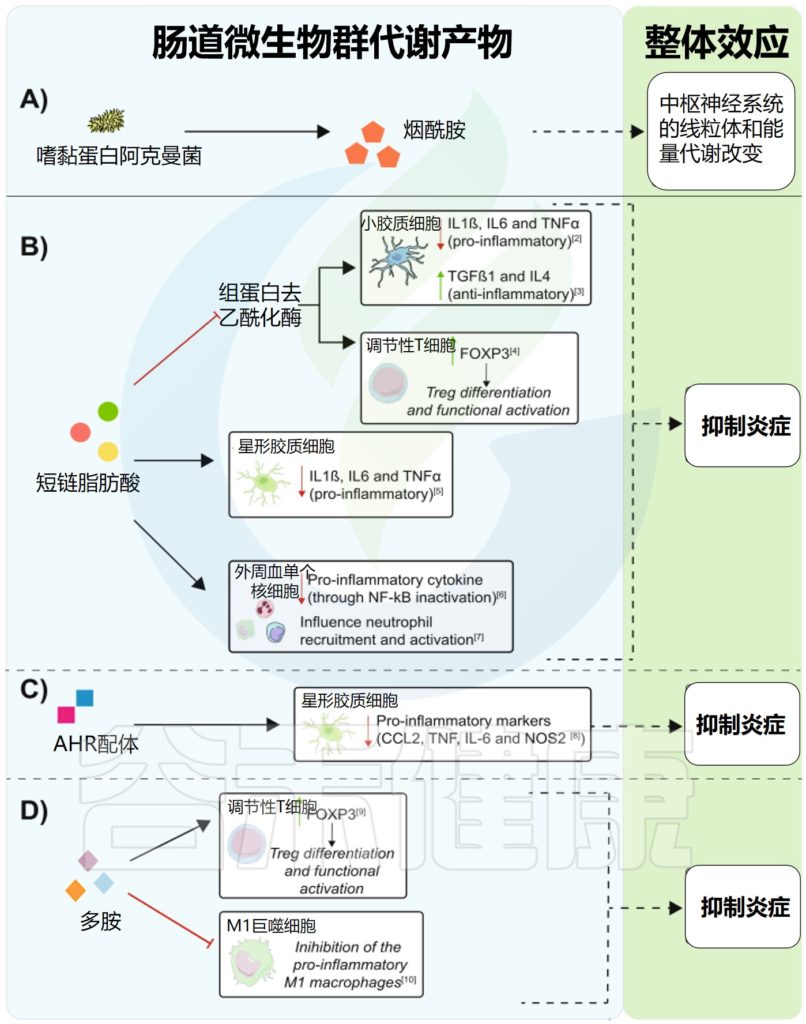
doi: 10.1186/s12916-020-01885-3
a) 肠道菌群释放的代谢物可以进入系统循环,在那里它们可以进入中枢神经系统;对于Akkermansia muciniphila释放的烟酰胺,这可能会改变能量稳态和氧化应激。
注:烟酰胺是 NAD 和 NADP 的前体,它们是能量转导和抗氧化途径以及其他细胞信号传导机制的适当功能所必需的辅酶,其中许多与 ALS 相关的神经变性有关。
b – d存在许多提议的机制,微生物代谢产物可以通过这些机制影响免疫反应并对中枢神经系统炎症状态产生影响:
b) 短链脂肪酸可通过抑制小胶质细胞内的HDAC来减少炎症,从而导致促炎因子(IL-1β、IL-6和TNF-α)的下调和抗炎标志物(TGF-β和IL-4)的上调。
c) 芳基烃受体(AHR)配体可调节星形胶质细胞活性并产生抗炎特性。
d) 多胺诱导Treg细胞中FOXP3表达,促进其分化和活化。这些分子还可以抑制炎性巨噬细胞(M1),从而防止巨噬细胞诱导的炎症。
在神经递质方面:
渐冻症患者的GABA(缺乏易焦虑、失眠等)、一氧化氮(抑郁、焦虑等),乙酸、丙酸(短链脂肪酸,缺乏导致炎症)水平均低于对照人群。
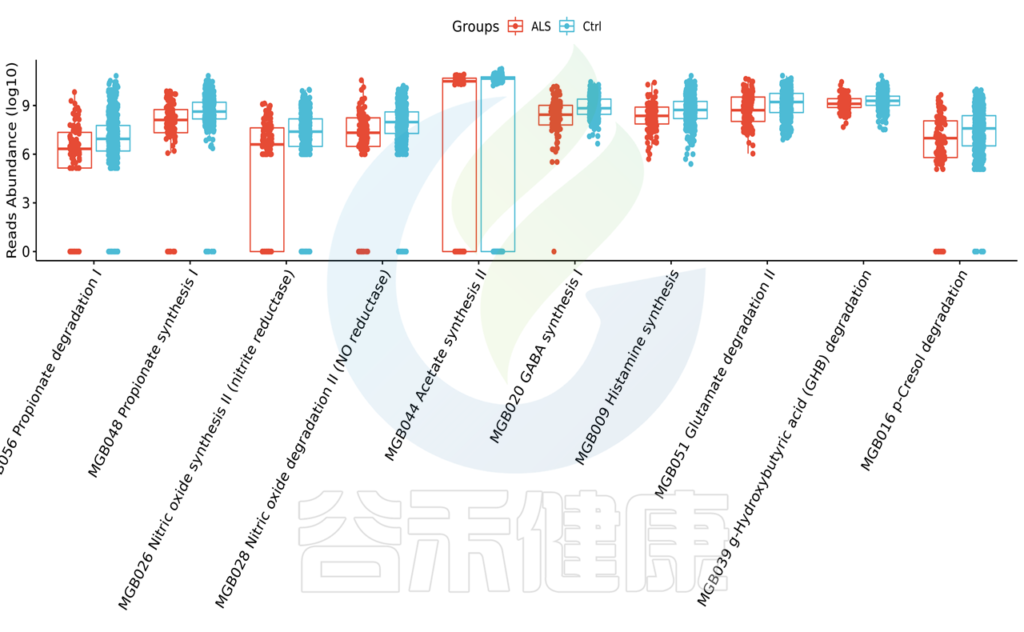
而对甲酚(毒性代谢物,引发便秘等)高于对照人群。这或许也与ALS患者中可能出现的便秘等胃肠道症状有关。
(来源:谷禾菌群数据库)
肠道菌群将饮食和环境化合物转化为神经毒素
β-甲基氨基-1-丙氨酸(BMAA)是一种众所周知的神经毒性氨基酸,在关岛的肌萎缩性侧索硬化症/PDC患者的大脑中发现,被认为是由肠道中的标准饮食化合物产生的。例如,蓝细菌和其他具有厌氧甲基化功能的细菌可以通过L-丝氨酸和L-丙氨酸的甲基化来生物合成BMAA。
肠道微生物还可以将L-色氨酸等氨基酸转化为吲哚等生物活性分子,一旦磺化,就会引发神经炎症和神经元损伤。肠道菌群可以将胆碱和L-肉碱代谢为三甲胺(TMA),然后将其脱甲基为二甲胺(DMA)和甲醛。
根据体外和体内研究,甲醛会导致线粒体膜损伤、危险自由基的产生以及神经元Tau蛋白的错误折叠和积累,从而导致ALS发病。
环境污染物也会通过微生物群的作用产生负面影响。
暴露于多环芳烃(PAHs)是ALS的危险因素,肠道微生物可以逆转PAHs的内源性解毒过程,将其再生为苯并[a]芘(BaP),其神经毒性作用已在斑马鱼中得到证实。
此外,肠道菌群失调可能是ALS中观察到的代谢改变的原因。有趣的是,肠道生物失调,特别是厚壁菌门的减少与更高的REE有关,这可能是ALS患者能量消耗增加的原因。
菌群诱导的炎症在ALS发病机制中的作用
▸ 肠道菌群影响先天性免疫系统和适应性免疫系统
ALS发病机制的一个既定关键点是神经炎症;它与驻留和外周免疫细胞的复杂失调有关(例如小胶质细胞和星形胶质细胞活化、T细胞浸润和促炎介质增加)。
肠道菌群与肠道免疫系统进行沟通,有助于维持免疫耐受性,并在炎症期间形成免疫反应。一旦病原体入侵或肠道内微生物渗漏,微生物相关的分子模式可以刺激先天细胞产生促炎细胞因子,进而激活适应性免疫细胞,从而促进免疫稳态的破坏。
除了先天免疫细胞外,肠道微生物还可以直接影响适应性免疫系统主要成分CD4+和CD8+T细胞的发育和分化。
▸ 肠道菌群失调会影响几个大脑生物学过程
无菌小鼠和抗生素治疗小鼠模型显示出广泛的免疫异常,包括改变小胶质细胞的密度、形态和成熟度,表明肠道菌群可以影响中枢神经系统免疫细胞的发育和功能。
▸短链脂肪酸影响Tregs,从而影响ALS
短链脂肪酸是膳食纤维的最终代谢微生物产物,主要由拟杆菌和厚壁菌门产生。已知它们通过组蛋白脱乙酰酶抑制介导调节性T细胞(Tregs)诱导。
ALS的特点是同时激活不同的淋巴细胞亚群Th1和Th17,并减少Tregs,Tregs在小鼠和人类中都具有保护作用;更多的Treg与疾病进展缓慢相关。
Tregs已被证明直接将巨噬细胞从M1状态分化为M2状态,M2小胶质细胞与稳定的疾病阶段相关,而Th1和M1小胶质细胞在快速进展阶段占主导地位,表明从保护转变为毒性。
▸肠道菌群改变影响ALS症状的发生和发展
一项研究发现,肠道菌群改变先于循环和CNS免疫系统的扩张和激活,以及症状的发生和发展。
肠道菌群驱动的促炎信号可能对神经胶质的生理功能、维持神经元健康至关重要。事实上,肠道菌群通过芳基烃受体(AHR)介导的涉及I型干扰素信号传导的机制调节星形胶质细胞活性。
肠道菌群对ALS药物疗效的影响
肠道菌群也可以通过肠道药物的代谢影响疾病。
2019年,一项研究评估了一组肠道细菌代谢一系列常用处方药物的能力,其中包括利鲁唑,这是唯一一种显示对ALS患者具有生存益处的药物。
筛选出的40种细菌对利鲁唑进行了显著的代谢,其中许多细菌在人群中的流行率不同。
据报道,与相对较高的患者间变异性相比,利鲁唑的血浆浓度显示患者内变异性较低,这不能通过肠道吸收后的代谢差异来解释。肠道菌群对利鲁唑生物利用度的修正可以解释患者间血浆水平的变化。
肠道菌群对非运动肌萎缩侧索硬化症状的影响
肠道菌群与影响ALS患者的其他症状有关,如抑郁、焦虑和便秘。肠道微生物群可以产生各种肽和神经递质,它们可以直接影响情绪,而大脑通过包括应激反应在内的多种机制影响肠道。解开肠道微生物群在调节与神经精神疾病相关的大脑功能方面的作用才刚刚开始,但这有可能成为改善ALS患者生活质量的一种手段。
关于便秘,ALS患者经常报告的另一种症状,管腔液中微生物组(胆汁酸的代谢、短链脂肪酸的产生和甲烷的产生)以及结肠粘膜层在调节液体进入血流中的吸收中的作用都已被提出。无论疾病进展如何,改善这些症状的管理都会提高生活质量。
以上我们可以知道肠道菌群可以通过代谢亢进和胃肠道异常影响 ALS,从而更深入地了解 ALS 背后的微生物组-宿主相互作用的复杂网络。
一些不太了解的人容易把渐冻症和其他神经退行性疾病搞混。四大常见的神经退行性疾病有:肌萎缩侧索硬化症(渐冻症)、亨廷顿氏病、阿尔兹海默症(老年痴呆)、帕金森氏病,在这里简单讲述一下区别。
▸ 阿尔兹海默症
阿尔茨海默病(AD)是一种起病隐匿的进行性发展的神经系统退行性疾病。临床上以记忆障碍、失语、失用、失认、视空间技能损害、执行功能障碍以及人格和行为改变等全面性痴呆表现为特征,病因迄今未明。
该病起病缓慢或隐匿,病人及家人常说不清何时起病。多见于70岁以上老人,少数病人在躯体疾病、骨折或精神受到刺激后症状迅速明朗化。女性较男性多(女∶男为3∶1)。
✦与渐冻症的区别
渐冻症也叫做运动神经病。病变主要累及到上下运动神经元,主要表现为肢体无力,肌肉萎缩,肌束颤动,可以伴饮水呛咳,吞咽困难等表现。
阿尔茨海默病主要是影响患者的精神行为能力,执行能力,思维反应,生活能力。肢体上一般不会出现萎缩无力的症状。
▸ 帕金森氏病
帕金森氏病又称为震颤麻痹,是一种影响患者活动能力的中枢神经系统慢性疾病,多发生于中老年以上的人群。
•表现症状
本病早期主要表现包括静止性震颤、肌强直、行动缓慢、动作起动困难和姿势异常等。静止性震颤即患者的手或臂不受控制地发抖,在休息时出现或情绪紧张时加重。
后来人们发现除了震颤外、还有慌张步态(走路时小碎步且越走越快)、小写症(写字越来越小)、行走时上肢无前后摆动等其它症状。
✦与渐冻症的区别
•发病原因不同
帕金森病由于脑部纹状体出现损伤导致多巴胺分泌障碍而导致的一种疾病,其发病原因和脑部外伤、年龄增大等因素有一定的关系。
而渐冻症的发生多数情况下病因不明,少数是遗传因素所导致的,常常会出现运动神经元的损伤。
•临床表现不同
临床表现:帕金森病患者会出现四肢发抖、不灵活等异常症状,一般不会出现肌肉萎缩。但是渐冻症发生以后常常会有肌肉萎缩的情况发生,会使患者逐渐丧失正常的运动功能。
•危害性不同
帕金森病是神经性系统病变,主要表现是颤抖,可引起运动迟缓,步态异常。
渐冻症是运动神经元疾病,主要表现是肌肉逐渐萎缩和无力,可出现吞咽困难、语言困难以及呼吸衰竭等比较严重的情况。
▸ 亨廷顿氏病
又叫大舞蹈病或亨廷顿舞蹈症。一种常染色体显性遗传性神经退行性疾病,主要病因是患者第四号染色体上的基因发生变异,产生了变异的蛋白质,该蛋白质在细胞内逐渐聚集在一起,形成大的分子团,在脑中积聚,影响神经细胞的功能。
•表现症状
一般患者在中年发病,表现为舞蹈样动作,随着病情进展逐渐丧失说话、行动、思考和吞咽的能力,病情大约会持续发展10年到20年,并最终导致患者死亡。
✦与渐冻症的区别
•运动方面
亨廷顿氏病表现出肢体的跳动或抽动,但渐冻症是肌肉萎缩导致无力运动,抽动也不同与渐冻症初期的“肉跳”,这是一种类似于“舞蹈”的大幅运动。
•认知方面
渐冻症患者的意识清晰,不会出现认知障碍。
但亨廷顿氏病会表现出进行性痴呆。日常生活和工作中的记忆和计算能力下降,患者记住新信息仅有轻度损害,但回忆有显著缺陷。
情感障碍是亨廷顿氏病最多见的精神症状,包括焦虑、紧张、兴奋易怒、或淡漠、或兴趣减退。
亨廷顿病患者还可出现人格行为改变,出现反社会行为、精神分裂症、偏执狂和幻觉。
渐冻症的诊断
在诊断上,由于仍不明确渐冻症的发病原因及机制,该病还未筛选出特异性诊疗标记物。
此外,前面我们提及的渐冻症早期症状不具有典型性,必须与其他神经退行性疾病相鉴别,所以早期患者会花费大量人力物力财力及时间做鉴别诊断来排除。
✦表现诊断
(1)检查要评估咀嚼和吞咽的肌肉力量,包括口腔、舌及咽喉肌。
(2)下运动神经元(LMN)功能,如肌肉萎缩情况,肌肉力量或肌肉跳动(称为肌束震颤)。
(3)上运动神经元(UMN)功能,如腱反射亢进和肌肉痉挛(肌肉紧张和僵直的程度)。
(4)情绪反应失去控制,如哭或笑的情绪变化。思维的变化如丧失判断力或失去基本的社会技能。检查者也会评估患者言语流畅性及文字识别能力。这些症状不常见,不容易引起重视。
注意:神经科医生还将询问如疼痛,感觉丧失或锥体外系问题。
✦检测诊断
肌电图(EMG):将针状电极穿过皮肤插入到各种肌肉中。该测试评估肌肉收缩和休息时的电活动。在肌电图中看到的肌肉异常可以帮助医生诊断或排除渐冻症。
神经传导研究:这项研究测量神经向身体不同区域的肌肉发送冲动的能力。该测试可以确定是否有神经损伤或某些肌肉或神经疾病。
核磁共振:核磁共振可以生成大脑和脊髓的详细图像。显示脊髓肿瘤、颈椎间盘突出或其他可能导致症状的情况。
血液和尿液检查:在实验室分析您的血液和尿液样本可能有助于鉴别诊断。
脊椎穿刺(腰椎穿刺):获取脑脊液来完善检查,帮助诊断及排除渐冻症。
肌肉活检:如果医师认为患有肌肉疾病而不是渐冻症,这项检查将在局部麻醉状态下获取您的肌肉组织,再进行分析检查。
使用菌群特征对渐冻症和对照人群进行预测
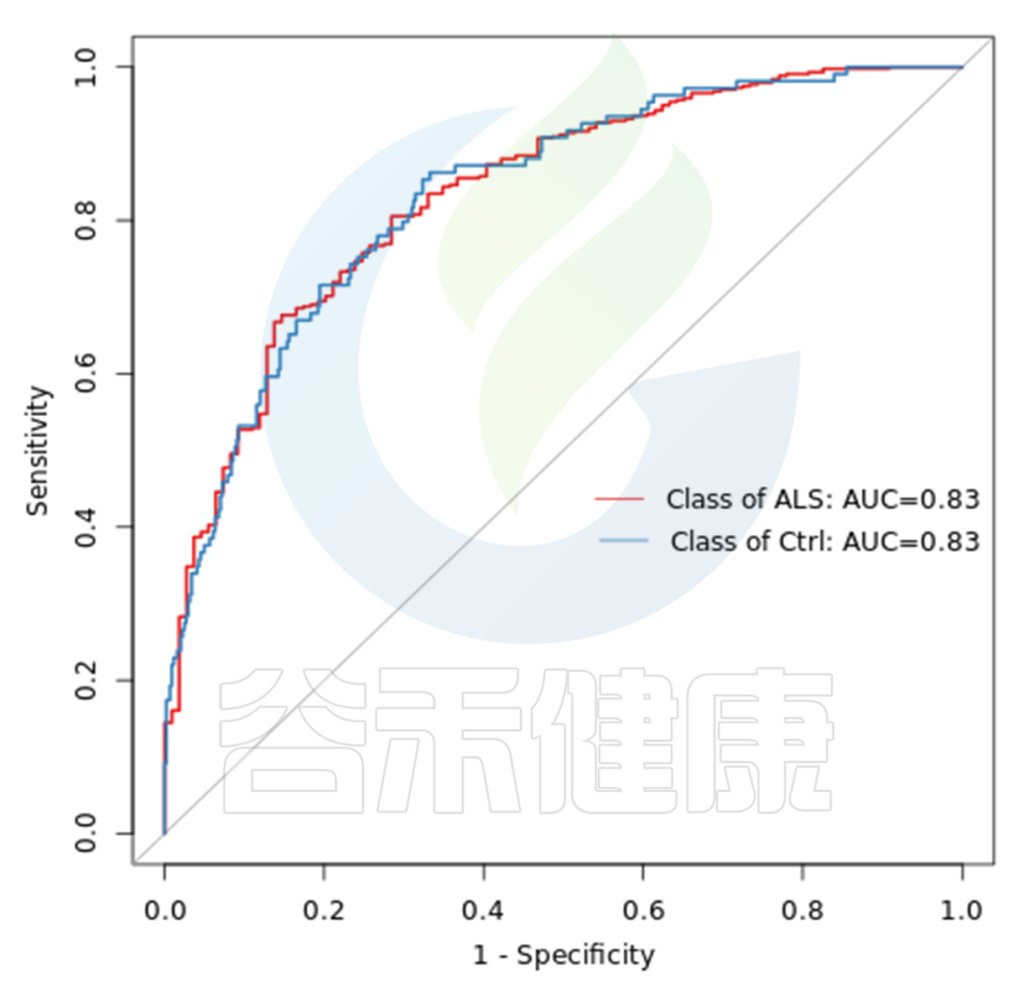
综合代谢和其他指标后:综合准确度:0.88
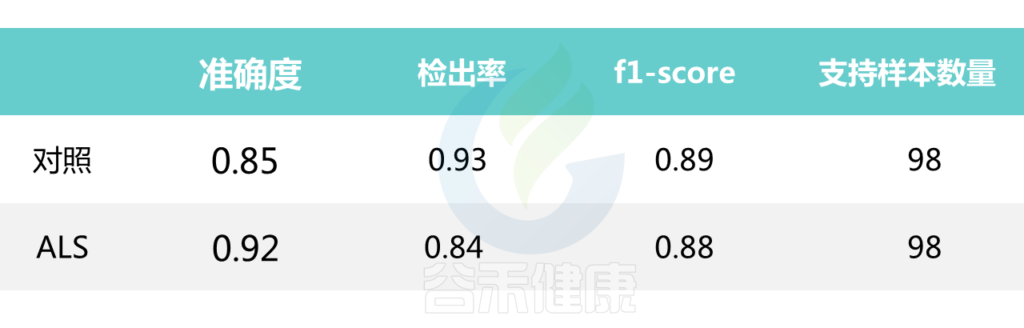
可以理解为基于菌群特征,可以分辨出84%的ALS患者。
(来源:谷禾菌群数据库)
虽然渐冻症目前无法彻底治愈,但有一些治疗方法可以减缓身体功能的丧失,并改善患者的生活质量。
基于神经系统的药物
Riluzole (Rilutek,利鲁唑)
是一种口服药物,是 FDA 证明的 ALS 疾病缓解治疗药物。
据报道可通过降低谷氨酸水平来减少对运动神经元的损害,谷氨酸在神经细胞和运动神经元之间传递信息。对肌萎缩侧索硬化患者的临床试验表明,利鲁唑可延长几个月的生存期,尤其是延髓型疾病。
注:有吞咽困难的人可能更倾向于在舌头上溶解的增稠液体形式 (Tiglutik) 或片剂 (Exservan)。
依达拉奉(Radicava)
通过静脉输注给药,已被证明可以减缓 ALS 患者日常功能临床评估的下降。
研究人员认为,依达拉奉通过清除自由基起作用,从而减少对神经系统的损害并减缓疾病进展。
苯丁酸钠-牛磺酸二醇(Relyvrio)
Relyvrio 治疗 ALS 的疗效在一项为期 24 周的多中心、随机、双盲、安慰剂对照、平行组研究中得到证实。
在 ALS 患者中使用苯丁酸钠-牛磺酸二醇。据报道,根据 24 周内的 ALSFRS-R 评分,苯丁酸钠-牛磺熊二醇导致的功能下降速度比安慰剂慢。
Relyvrio 可以通过将一包与 8 盎司室温水中混合来口服。它也可以通过饲管给药。前三周的推荐剂量是每天一包(3 克苯丁酸钠和 1 克牛磺熊二醇)。三周后,剂量增加到每天两次一包。药物可以在吃零食或用餐前服用。
注意:
Relyvrio 最常见的不良反应是腹泻、腹痛、恶心和上呼吸道感染。Relyvrio 含有牛磺熊二醇,一种胆汁酸,可能会导致患有干扰胆汁酸循环的疾病的患者腹泻恶化。这些患者在服用 Relyvrio 之前应考虑咨询专科医生。
巴氯芬(Baclofen)
巴氯芬通过放松身体肌肉帮助缓解肌肉痉挛。
研究表明,当巴氯芬与辅助或无辅助的运动范围物理治疗一起使用时,它在缓解肌肉痉挛方面特别有效。
注意:必须密切监测巴氯芬的剂量,以避免患者过早服用高剂量(如40至80mg)时出现四肢和躯干无力。
基于消化系统的药物
格隆溴铵
多种药物可以降低唾液分泌量。随着吞咽变得更加困难,它通常会积聚在嘴里。最常见的药物之一是格隆溴铵( Robinul )。
硫酸阿托品
硫酸阿托品有助于缓解唾液过多。阿托品 0.4 mg片剂
三己基苯
三己基苯甲酰也有助于控制过多的唾液。
医生可能会开其他消化系统疾病的药,以帮助缓解 ALS 的其他症状,如便秘等。
基于人体其他系统的药物
替扎尼定(Tizanidine)
替扎尼定通过放松肌肉帮助缓解肌肉痉挛。
替扎尼定通过阻断从大脑发送到肌肉的神经信号起作用。
替扎尼的给药剂量范围为每天 2-10 毫克。
注意:副作用虽然不常见,但偶尔可能包括虚弱、便秘、头晕和其他问题。
甲基钴胺素
甲基钴胺素或甲基B12是一种每日注射的药物,用于提高能量和增强肌肉力量。这些成分需要处方:25 mg/1mL(pH 2.7-3.0)
谷胱甘肽
谷胱甘肽经常对四肢力量有效。它是静脉注射的。需要蝶形注射器。这些成分需要处方:复方谷胱甘肽200mg/ml。
硫酸奎宁
硫酸奎宁可减少痉挛。
睡前一晚应该停止或显著减少肌肉痉挛。需要324毫克胶囊的处方,不含填料/防腐剂。
通常,当替扎尼定和/或巴氯芬未成功治疗ALS患者时,使用硫酸奎宁。
注意:药物的副作用可能包括过敏反应、血栓形成(血管内形成血块)或肾脏问题。
Nuedexta
Nuedexta可以改善咀嚼和吞咽,此外还可以缓解假性延髓的影响——过度大笑和/或哭泣。即使这些不是当前的问题,Nuedexta也经常作为预防剂,可能会延迟延髓问题的发生。通用配方右莫特沙芬25毫克/奎尼丁10毫克
美西律Mexilitine
每天服用300毫克美西律可以缓解肌肉痉挛。这种药物可以由神经科医生或医生开具。200 mg胶囊(普通)
NeuRx隔膜起搏系统
NeuRx隔膜起搏器采用微创方法,经科学和临床证明可保持隔膜肌的力量和由此产生的肺活量。
其他,例如地西泮(Diastat、Valium )等止痛药或肌肉松弛剂有助于缓解痉挛。
非甾体抗炎药 (NSAIDs)
由于炎症 促进ALS的发展,研究人员推测NSAIDs(抗炎药)可能具有保护作用。然而,一些临床试验并未发现对ALS患者的总体生存率有任何有益的影响。
非甾体抗炎药,如布洛芬或萘普生,可能有助于缓解全身疼痛和不适。
注意:由于潜在的胃肠道和心血管副作用,非甾体抗炎药只能按照指示服用。
加巴喷丁 (Gabapentin)
加巴喷丁是抗癫痫药物,但也可用于ALS。
动物研究表明,加巴喷丁可以改善ALS患者的生存率,临床试验表明,它可以减少ALS患者肌肉痉挛和抽搐。
加巴喷丁通过调节谷氨酸水平(类似于利鲁唑)发挥作用。
注意:加巴喷丁的副作用包括疲劳、体重增加、消化不良、嗜睡、头晕、共济失调和震颤。
三环类抗抑郁药(Tricyclic antidepressants)
这些药物广泛用于ALS的治疗,具有多种作用。特别是,抑郁和焦虑在ALS中很常见,适当剂量的三环类药物可以缓解抑郁。
注意:副作用,如口干和体重增加,也可能帮助ALS其他症状,如口腔唾液过多和体重减轻。
吗啡(Morphine)
吗啡是一种阿片类药物,可用于治疗疼痛。吗啡有助于缓解晚期ALS患者呼吸不足的感觉。
在情绪不稳定的情况下,可以使用选择性 5-羟色胺再摄取抑制剂、阿米替林、苯二氮卓类药物和氢溴酸右美沙芬/硫酸奎尼丁等。
饮 食
营养对肠道微生物群有直接影响,肠道微生物群会影响局部肠道免疫反应,进而影响自身免疫反应。
饮食中存在具有抗氧化潜力的化合物,例如维生素、姜黄素、辅酶 Q10等,可用作治疗策略。
应排除或限制的食物
▸ 避免海鲜类
文献报道,日本Kii半岛ALS的高发病率可能与β-甲基氨基-L-丙氨酸(BMAA)有关。BMAA是一种天然的神经毒性非蛋白氨基酸,由苏铁种子根部的共生蓝藻产生,苏铁种子在该地区尤为常见。假设该区域的ALS患者无法阻止BMAA积聚。
BMAA的饮食来源可能是海鲜,如鱼、贻贝、螃蟹和牡蛎。关岛也报告了ALS的高发病率,该岛的人口使用潜在的苏铁衍生产品。BMAA污染的另一个可能来源可能是果蝠或飞狐,因为它们食用苏铁种子,它们是当地居民饮食的组成部分。
尽管还需要更多的研究,但最近研究人员使用斑马鱼幼虫模型证明了BMAA与微囊藻毒素亮氨酸和精氨酸(其他氰毒素)之间的关系。此外,暴露于BMAA的新生大鼠受到运动缺陷的影响,这表明神经发育过程中的暴露可能导致ALS。先前的研究研究了BMAA对神经变性的作用机制:BMAA杀死NADPH黄递酶阳性运动神经元,并对影响运动神经元损伤的神经胶质细胞起毒性作用。
▸ 避免高脂饮食 (有争议)
ALS患者过度摄入脂肪食物,尤其是饱和脂肪食物,以及ROS防御机制的丧失,如SOD1基因的突变,是ALS患者出现的主要方面。因此,将某些国家大量食用脂类食品与发现ALS病例的可能性更大联系起来是合理的。
这可以部分解释为什么在瑞典和苏格兰等州ALS发病率如此之高,众所周知,这些州的饮食特别注重脂肪食物的摄入。
然而,脂肪摄入在ALS中的作用存在争议,因为不同的研究显示了相反的结果。Nelson等人证明,高脂肪摄入与ALS发病相关。另一项研究显示了相反的结果:脂肪摄入量较高的受试者患ALS的风险降低。
▸ 避免谷氨酸盐饮食
据报道,ALS中存在谷氨酸的不良反应。它是大脑中的主要兴奋性神经递质,蘑菇、牛奶和富含蛋白质的食物中存在的高水平谷氨酸会导致细胞内钙水平升高,从而促进神经元死亡。
▸ 避免重金属饮食
暴露于金属被认为是ALS的一个可能的风险因素,但结果并不确凿。研究表明,镉和铅可能与患ALS和锌的风险增加有关,而根据疾病前血液中的金属水平,其风险降低,其中铅具有最强的先验联系。
汞被怀疑是ALS发病机制的一部分,但结果尚无定论,尤其是饮食中的汞暴露,尤其是海鲜消费。汞由几个行业生产,并储存在鲨鱼、旗鱼、鲭鱼和金枪鱼等水生食肉生物中。
汞可以产生氧自由基,促进兴奋毒性,减少DNA、RNA和蛋白质合成,所有这些过程都与ALS相关。然而,一些研究报告称,ALS患者和非ALS患者接触的汞量相同。差异可能是ALS患者由于遗传/表观遗传倾向而更易受汞影响。
注意
不同研究之间的差异可能是由于单一金属分析可能无法充分评估健康风险的相关性,这表明毒物暴露与添加剂或协同效应相互作用的可能性。
可以引入的饮食
早期研究表明,存在于水果、蔬菜、咖啡、茶和全谷物中的多酚(例如,白藜芦醇、姜黄素、表没食子儿茶素没食子酸酯、槲皮素和酚酸)可能对 ALS 具有良好的神经保护作用。
在体内和体外观察到,这些生物活性化合物可能具有调节线粒体生物发生、改善能量代谢、减少有毒蛋白质聚集、减少小胶质细胞和星形胶质细胞炎症以及改善运动功能和生存的潜力。
ALS 患者的营养护理应包括多摄入水果、蔬菜、高纤维谷物和瘦肉蛋白质来源,如鱼和鸡肉等。
——哥伦比亚大学临床流行病学和营养学副教授Nieves
多摄入水果蔬菜
一项包括超过 302 名 ALS 患者的研究中,水果、蔬菜、抗氧化剂和 β-胡萝卜素被证明与 ALS 功能增强有关。
在一项针对 77 名韩国人的小型研究中,当具体研究水果和 β-胡萝卜素的好处时,增加摄入量与散发性肌萎缩侧索硬化的风险降低有关。
遵循地中海饮食
一种已知的高酚饮食是地中海饮食,也被证明通过高橄榄油含量减少神经退化。暴露于高初榨橄榄油饮食的SOD1G93A小鼠寿命延长,运动能力提高。
第二项支持性研究表明,特级初榨橄榄油提取物在从SOD1G93A小鼠模型获得的培养物中充当神经保护剂。该提取物通过下调SOD1突变刺激的活化胶质细胞释放的一氧化氮的量来减少神经变性。此外,TLR4信号通路(ALS中已知的致病通路)被橄榄油提取物抑制。
另一组关注草莓中富含花青素的提取物,这是一种以抗氧化、抗炎和抗凋亡特性而闻名的化合物。花青素属于黄烷类,是一种植物酚类。他们发现,补充了该提取物的hSODG93A小鼠表现出延迟发病和延长生存期。
饮食习惯
ALS发病的主要因素之一似乎是以脂质为主的饮食,由于ROS的高释放,在神经退行性变中起着至关重要的作用。
25–68% 的 ALS 患者表现出能量消耗增加的代谢亢进表型,尤其是在休息时。
晚期ALS患者可能需要高脂饮食作为补偿热量摄入
最近的研究表明,与健康个体相比,症状前ALS患者可能会增加每日总能量消耗。
在 ALS 中,体重减轻是一个独立的预后因素,体重指数 (BMI) 每下降 1 点,死亡率就会增加 30%.
高脂肪含量的高热量食物补充剂可以稳定晚期ALS患者的体重减轻。这可以通过症状前小鼠的研究报告的代谢变化来解释。
ALS患者因吞咽困难和食欲不振而导致的食物摄入不足和体重减轻,可能反映出代谢过度和分解代谢需求增加(下图)。这可能导致ALS患者通过摄入脂肪食物来增加热量摄入,作为补偿措施。
健康个体与肌萎缩侧索硬化症患者之间的代谢差异
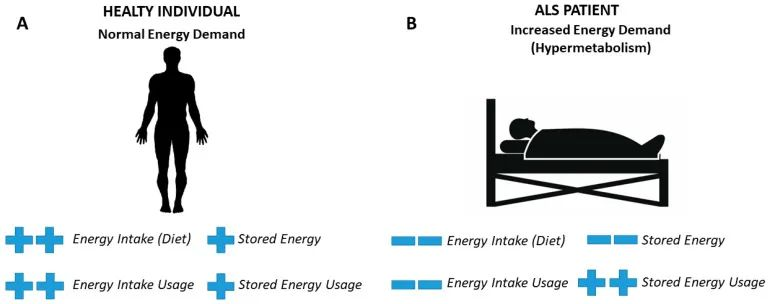
(A) 在健康个体中,在正常能量需求期间,能量摄入用于满足能量需求,但当存在过量能量时,能量储存在脂肪组织和肝脏中。无法维持能量供应会导致负能量平衡,在这种情况下,脂肪组织和肝脏中的能量储备用于满足能量需求。
(B) 肌萎缩侧索硬化症患者出现高代谢,即能量需求增加。事实上,在ALS中,能量摄入减少导致脂肪组织和肝脏中能量储存减少,并增加对储存能量使用的依赖性。因此,ALS患者体重指数的下降是负能量平衡和高代谢的结果。
益生菌
发表在《自然》杂志上的一项详细研究表明,肠道补充Akkermansia muciniphila(一种在肠道粘蛋白降解中起重要作用的肠道微生物)可以改善转基因SOD1G93A小鼠的ALS症状。
在代谢产物水平上,肠道补充的Akkermansia muciniphila的有益作用被证明依赖于SOD1G93A小鼠中枢神经系统中烟酰胺水平的增加,同时也证明ALS患者体内烟酰胺水平下调。然而,在ALS模型和患者中,粘蛋白降解产生短链脂肪酸,一些产生SCFA的细菌受到负面影响。
关于AKK菌详见:
在每天接受6个月益生菌治疗的ALS患者中,Rikenellaceae的丰度显著增加。
益生菌配方是五种乳酸菌的混合物:嗜热链球菌ST10–DSM 25246、发酵乳杆菌LF10–DSM 19187、德氏乳杆菌LDD01–DSM 22106、植物乳杆菌LP01–LMG P-21021和唾液乳杆菌LS03–DSM 22776。无因补充益生菌引起的不良事件。与对照组相比,可调节ALS患者的细菌多样性,ALS患者门、科和属水平的蓝细菌显著增加,益生菌组和安慰剂组的蓝藻丰度都随着时间的推移而减少,尽管差异并不显著。
益生元
2013年发表的研究报告了转基因SOD1G93A小鼠中最常用的益生元的有益效果,其中一项研究就是在该动物模型中施用低聚半乳糖,延缓了疾病的发作,延长了小鼠的寿命,显著减少了运动神经元的损失和肌肉萎缩,并改善SOD1G93A小鼠中枢神经系统的炎症反应。
其他被广泛使用的益生元化合物是多不饱和酸。特别是,在一项包括美国五个ALS患者的前瞻性队列的纵向研究中,表明摄入Omega-3多不饱和酸可以延缓疾病的发作。
然而,转基因SOD1G93A小鼠在症状前阶段的膳食中补充二十碳五烯酸加速了疾病的进展,缩短了小鼠的寿命,这表明这种多不饱和酸的毒性醛氧化产物在动物的脊髓中增加了,增加了反应性小胶质细胞。
后生元
后生元制剂是生物家族的最新成员,包括由食品级微生物在发酵过程中产生的生物活性化合物,如短链脂肪酸、微生物组分、功能蛋白、分泌多糖、细胞外多糖(EPS)、细胞裂解液、磷磷磷酸、肽甘聚糖衍生的肽和柱状结构。
丁酸盐的施用增加了血液中Treg淋巴细胞的水平,有利于降低炎性细胞因子IL-17的水平,并减缓SOD1G93A转基因小鼠的疾病进展。
粪菌移植
一例ALS女性患者,他们在12个月的随访中通过经内镜肠内管接受了冲洗微生物群移植(WMT),一种改良的粪便微生物群移植术(FMT)。
该病例报告首次展示了使用WMT治疗ALS的直接临床证据,表明WMT可能是控制这种所谓不治之症的新治疗策略。
值得注意的是,患者后来遭受的意外头皮创伤用处方抗生素治疗,导致ALS恶化。随后的抢救性WMT成功地阻止了病情的发展,并迅速改善。
其他补充剂
★ 肌酸
肌酸是一种膳食补充剂,因其有益效果值得关注。它是由精氨酸、甘氨酸和蛋氨酸合成的内源性化合物。由于大部分肌酸储存在骨骼肌中,运动员习惯于将其融入饮食中,以改善肌肉张力。
最近的研究描述了肌酸在预防或延缓神经退行性疾病发病方面的新用途。特别是长期补充肌酸可提高存活率和改善运动协调性。他们测量了肌酸的神经保护作用,研究了SOD1基因改变版本的转基因小鼠。结果表明,肌酸给药保护神经元免受氧化损伤。补充肌酸的运动员无不良副作用。
然而,2003年和2004年完成的两项临床试验测试了口服肌酸补充剂,仅在ALS患者的寿命和肌肉强度方面提供了很少的显著改善。因此,需要更多的研究来了解肌酸的实际作用量,因此,东北肌萎缩侧索硬化症联盟(NEALS)目前正在分析补充肌酸的长期影响。
★ 辅酶Q10
辅酶Q10(CoQ10)或泛醌,一种内源性产生的脂质,存在于我们的饮食中,作为线粒体呼吸系统的辅因子发挥作用。
泛素醇是辅酶Q10的还原形式,具有抗氧化和抗炎作用。它避免了自由基的形成、蛋白质、脂质和DNA的变化,并降低了脂质过氧化的浓度。
此外,在包括神经系统疾病在内的许多疾病中,ROS的增加与辅酶Q10的缺乏之间存在关联。
一些研究报告了CoQ10在不同疾病中的有益作用,如高血压、纤维肌痛和男性不育。辅酶Q10还用于几种神经退行性疾病,如ALS和帕金森病。均衡的饮食可以获得足量的辅酶Q10,但脆弱的受试者可能需要补充。尽管辅酶Q10耐受性良好,但研究仅限于孕妇和儿童。
注意:辅酶Q10可能会导致腹泻、呕吐和皮疹等副作用。此外,辅酶Q10可能会降低华法林等几种药物的治疗效果。
★ L-丝氨酸补充剂
氨基酸 L-丝氨酸的膳食补充剂也可作为神经保护剂。
L-丝氨酸的补充被确定为一种防止 BMAA 中毒的细胞保护剂,并导致 L-丝氨酸补充作为一种潜在的治疗方法。2018 年发表的 1 期临床试验报告称进展斜率降低了 34%.
★ 维生素
维生素参与神经系统的发育,可作为预后因素。由于其细胞抗氧化特性,它们也可用于ALS的治疗。它们通常具有良好的耐受性,不会造成显著的不良影响。然而,它们作为补充剂的用途仍存在争议。
——维生素E
补充维生素E对认知功能和神经系统疾病的影响是有争议的。几项研究表明,认知缺陷或阿尔茨海默病患者没有效果。其他研究发现,在ALS患者服用3个月的维生素E和利鲁唑后,维生素E可以降低OS标志物,这是一种有益的效果。然而,维生素E不影响患者的生存。
最近的研究表明,维生素E还具有调节功能,包括信号转导、抑制蛋白激酶C活性、炎症反应和基因表达调节。大量摄入维生素E(与鱼和海藻油中存在的多不饱和脂肪酸,如Omega-3相关)与患ALS的风险降低50-60%相关。尽管补充维生素E对神经退行性疾病有保护作用,但其疗效仍有待证明。
——维生素C
另一种在ALS中具有潜在作用的维生素是维生素C。已经进行了有限的研究,并使用了少量样本。在ALS之前,在动物模型中补充维生素C不会影响ALS的发病,但可以减少疾病导致的瘫痪的进展。
谷禾数据库中也发现,ALS患者肠道菌群检测结果中维生素C显著低于对照组。
——维生素A
据报道,在帕金森病和阿尔茨海默病等神经退行性疾病中,维生素A水平较低。然而,关于维生素A在ALS患者中的作用,存在着相互矛盾的结果。菲茨杰拉德等人报告说,类胡萝卜素中含有的维生素A摄入量高与ALS发病风险低相关。其他研究发现维生素A与ALS之间没有显著关联。
★ 植物化学物质
中国神经退行性疾病的低发病率可能是由于水果和蔬菜的广泛消费,这与植物化学物质的大量存在有关。
先前的研究表明,植物衍生的生物活性化合物,即植物化学物质,在神经退行性疾病中具有神经保护作用。事实上,越来越多的研究证实了它们的抗氧化特性。植物化学物质存在于蔬菜、谷物和水果中,在文献中通常被描述为“营养食品”。
植物化学物质包括广泛的化合物,如类胡萝卜素、酚类化合物和萜类化合物。
类胡萝卜素
类胡萝卜素是一种广泛存在于许多水果中的植物色素,具有典型的红色、黄色和橙色。它们的目标是过氧基。它们也是另一种抗氧化剂维生素A的前体。
文献报道了β-胡萝卜素与维生素E和C在清除活性氮物种方面的协同效应。先前的研究表明,类胡萝卜素的摄入与ALS风险呈负相关。
多酚
多酚是一类由多种分子组成的化合物。其特征在于存在至少一个对抗氧化和抗肿瘤活性重要的酚环,羟基、甲基或乙酰基取代氢。
在ALS动物模型中进行的几项研究表明,多酚具有神经保护作用。黄酮类化合物是酚类化合物的主要成分。它们属于一大类植物色素,其化学结构源自黄酮。它们由以下亚类组成:花青素、黄烷酮、黄烷-3-醇、黄酮、黄酮醇和异黄酮。
黄酮类化合物在神经炎症中发挥作用,抑制小胶质细胞激活并与神经元受体相互作用。人类神经元SH-SY5Y神经元细胞是一种神经退行性疾病模型,用几种黄酮类化合物,即槲皮素、异槲皮素和阿夫泽林进行治疗。治疗显示出下调环氧化酶-2表达和凋亡途径的有益效果。
白藜芦醇是一种在葡萄中发现的抗氧化化合物,由于其神经保护特性而受到广泛研究。它调节Sirtuin 1(SIRT1),Sirtuin脱乙酰化蛋白的主要成员,通过表观遗传基因沉默调节基因表达。一项研究表明,白藜芦醇增加了皮层和海马中SIRT1的表达,减少了认知障碍。
白藜芦醇可降低ALS 患者脑脊液 (CSF)的体外神经毒性,防止神经元丢失并改善 Ca2+ 稳态,这似乎与白藜芦醇的抗氧化能力有关。奇怪的是,与利鲁唑共同使用会抑制这种保护作用。
事实上,Ca 2+失稳与神经退行性疾病(包括肌萎缩侧索硬化)中自噬机制受损和毒性蛋白聚集有关。旨在调节自噬途径的治疗干预似乎是一种减少蛋白质聚集的有趣方法,主要是在 ALS 的早期阶段。
扩展阅读:
姜黄素
姜黄素是从姜科姜黄根茎中提取的,由于其抗炎和抗氧化特性,可能对神经退行性变具有有益作用,实验动物模型证明了这一点。然而姜黄素的临床疗效仍有争议。鉴于姜黄素作为抗氧化剂的强大活性,它可能在神经元退化中发挥关键作用。
事实上,活性氧(ROS)水平的增加会刺激促炎基因的转录和细胞因子的释放,如TNF-α、IL-1、IL-6以及导致神经炎症过程的趋化因子。因此,神经炎症的慢性可被认为是神经元变性的原因。
在小鼠模型中的几项研究表明,姜黄素可以降低氧化应激条件,增加抗氧化剂(如谷胱甘肽和超氧化物歧化酶)的水平。特别是,文献报道了家族性ALS中TAR DNA结合蛋白43(TDP-43)的过度表达和突变版本的存在。其结果是其在神经炎或细胞质中的聚集和定位错误。
研究人员使用突变的人类TDP-43产生的细胞ALS样模型分析了姜黄素作为治疗药物的潜在作用。他们证明姜黄素中存在的二甲氧基姜黄素对线粒体膜电位具有保护作用,降低了解偶联蛋白2的水平。
一项临床研究表明,纳米姜黄素和利鲁唑治疗1年可提高ALS患者的生存率。姜黄素对大鼠和人类均无不良毒理学影响。然而,在剂量反应研究中,一些患者表现出腹泻和恶心的发作,可能是副作用。
扩展阅读:
萜类化合物
萜类化合物是一个非常大的植物次级代谢产物家族。体外研究表明,从芳香植物中提取的二萜、单萜和倍半萜具有显著的抗氧化活性,表明它们是抗神经变性的化合物。
Omega-3 + 维生素E
并非所有显示出显著健康益处的天然化合物在神经系统疾病中也具有神经保护作用。例如,在ALS小鼠模型中补充Omega-3报告了细胞损伤的增加,可能会增加疾病进展。在最近的一项对家族性ALS小鼠模型的研究中也获得了类似的结果。然而,Omega-3和维生素E的组合可以降低ALS的风险。
其他疗法
物理治疗和特殊设备可以在ALS的整个过程中增强个人的独立性和安全性。
热疗或漩涡疗法以缓解肌肉痉挛。
建议适度锻炼,但可能有助于保持肌肉力量和功能。温和、低冲击的有氧运动,如散步、游泳和骑自行车,可以增强未受影响的肌肉,运动范围和拉伸运动有助于防止肌肉痉挛和挛缩。
物理治疗师可以推荐在不过度锻炼肌肉的情况下提供这些益处的锻炼。
职业治疗师可以建议使用夹板、坡道、矫正支架、助行器、扶手、伸展器、轮椅等设备,帮助个人节省能量并保持活动。
言语治疗和沟通训练,以尽可能多地保持口头沟通技巧。
特殊设备,如轮椅、电动床或床垫,以最大限度地提高功能独立性。
正念减压
发表在《欧洲神经病学杂志》上的一项研究结果,基于正念的计划可能有助于改善ALS患者的焦虑和抑郁。
进行了开放标签、随机临床试验,以评估正念练习是否改善了 100 名 ALS 患者在诊断后 18 个月的抑郁和焦虑。患者被分配接受常规护理或为期八周的正念减压 (MBSR) 计划。
注:
正念可以被认为是以非判断的方式,通过注意当前的时刻是如何新奇的,将注意力转移到时刻体验的过程。
MBSR计划的目标是将注意力转移到当下(“我现在在做什么;我现在的感觉如何”),并接受感觉、知觉和情绪,而不加评判。
研究表明,与接受常规护理的患者相比,使用 ALS 特异性 MBSR 的干预组报告了更好的生活质量和较低的抑郁水平。
注意:在疾病的所有阶段,都应考虑患者的个人意愿,并尽早开始预先护理计划。
ALS患者表现出不同的疾病严重程度,尽管已经确定了一些风险因素,但这些因素仍不足以充分解释这种异质性。肠道微生物组可能对解决这些差异至关重要,因为它可能直接或间接影响ALS。
进一步的研究对于识别ALS中的相关微生物参与者至关重要,以便在未来的治疗中将其作为目标,以改变肠道微生物群,调节疾病进展并改善生活质量。这种干预措施很可能会针对不同环境和不同基因型的患者进行个性化定制。
总的来说,有希望根据致病机制对病例进行更好的分类,以便进行具有有益效果的靶向治疗,并且ALS在未来将成为一种可治疗的疾病。
关爱渐冻症人群
编辑
目前虽然渐冻症难以彻底治愈,但科研人员从未放弃探索各种渐冻症的治疗方法。谷禾也将在肠道菌群领域帮助探索渐冻症患者的菌群特征,尽早发现疾病风险及时干预,同时也希望通过更多的数据和案例帮助像渐冻症一样的罕见病患者找到适合的基于自身菌群的干预方式。
注:本文未经作者授权不得转载。
本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献:
Stopińska K, Radziwoń-Zaleska M, Domitrz I. The Microbiota-Gut-Brain Axis as a Key to Neuropsychiatric Disorders: A Mini Review. J Clin Med. 2021 Oct 10;10(20):4640. doi: 10.3390/jcm10204640. PMID: 34682763; PMCID: PMC8539144.
Zhang Y, Ogbu D, Garrett S, Xia Y, Sun J. Aberrant enteric neuromuscular system and dysbiosis in amyotrophic lateral sclerosis. Gut Microbes. 2021 Jan-Dec;13(1):1996848. doi: 10.1080/19490976.2021.1996848. PMID: 34812107; PMCID: PMC8632307.
D’Antona S, Caramenti M, Porro D, Castiglioni I, Cava C. Amyotrophic Lateral Sclerosis: A Diet Review. Foods. 2021 Dec 17;10(12):3128. doi: 10.3390/foods10123128. PMID: 34945679; PMCID: PMC8702143.
Yu W, He J, Cai X, Yu Z, Zou Z, Fan D. Neuroimmune Crosstalk Between the Peripheral and the Central Immune System in Amyotrophic Lateral Sclerosis. Front Aging Neurosci. 2022 May 3;14:890958. doi: 10.3389/fnagi.2022.890958. PMID: 35592701; PMCID: PMC9110796.
Beers DR, Appel SH. Immune dysregulation in amyotrophic lateral sclerosis: mechanisms and emerging therapies. Lancet Neurol. 2019 Feb;18(2):211-220. doi: 10.1016/S1474-4422(18)30394-6. PMID: 30663610.
Chan GN, Evans RA, Banks DB, Mesev EV, Miller DS, Cannon RE. Selective induction of P-glycoprotein at the CNS barriers during symptomatic stage of an ALS animal model. Neurosci Lett. 2017 Feb 3;639:103-113. doi: 10.1016/j.neulet.2016.12.049. Epub 2016 Dec 21. PMID: 28011392; PMCID: PMC5278641.
Chen L, Liu X, Tang L, Zhang N, Fan D. Long-Term Use of Riluzole Could Improve the Prognosis of Sporadic Amyotrophic Lateral Sclerosis Patients: A Real-World Cohort Study in China. Front Aging Neurosci. 2016 Oct 24;8:246. doi: 10.3389/fnagi.2016.00246. PMID: 27822184; PMCID: PMC5075535.
Chiu IM, Phatnani H, Kuligowski M, Tapia JC, Carrasco MA, Zhang M, Maniatis T, Carroll MC. Activation of innate and humoral immunity in the peripheral nervous system of ALS transgenic mice. Proc Natl Acad Sci U S A. 2009 Dec 8;106(49):20960-5. doi: 10.1073/pnas.0911405106. Epub 2009 Nov 20. PMID: 19933335; PMCID: PMC2791631.
Cragnolini AB, Lampitella G, Virtuoso A, Viscovo I, Panetsos F, Papa M, Cirillo G. Regional brain susceptibility to neurodegeneration: what is the role of glial cells? Neural Regen Res. 2020 May;15(5):838-842. doi: 10.4103/1673-5374.268897. PMID: 31719244; PMCID: PMC6990768.
Erickson MA, Banks WA. Neuroimmune Axes of the Blood-Brain Barriers and Blood-Brain Interfaces: Bases for Physiological Regulation, Disease States, and Pharmacological Interventions. Pharmacol Rev. 2018 Apr;70(2):278-314. doi: 10.1124/pr.117.014647. PMID: 29496890; PMCID: PMC5833009
Chua JP, De Calbiac H, Kabashi E, Barmada SJ. Autophagy and ALS: mechanistic insights and therapeutic implications. Autophagy. 2022 Feb;18(2):254-282. doi: 10.1080/15548627.2021.1926656. Epub 2021 May 31. PMID: 34057020; PMCID: PMC8942428.
Oakes JA, Davies MC, Collins MO. TBK1: a new player in ALS linking autophagy and neuroinflammation. Mol Brain. 2017 Feb 2;10(1):5. doi: 10.1186/s13041-017-0287-x. PMID: 28148298; PMCID: PMC5288885.
Peggion C, Scalcon V, Massimino ML, Nies K, Lopreiato R, Rigobello MP, Bertoli A. SOD1 in ALS: Taking Stock in Pathogenic Mechanisms and the Role of Glial and Muscle Cells. Antioxidants (Basel). 2022 Mar 23;11(4):614. doi: 10.3390/antiox11040614. PMID: 35453299; PMCID: PMC9032988.
Calvo AC, Valledor-Martín I, Moreno-Martínez L, Toivonen JM, Osta R. Lessons to Learn from the Gut Microbiota: A Focus on Amyotrophic Lateral Sclerosis. Genes (Basel). 2022 May 12;13(5):865. doi: 10.3390/genes13050865. PMID: 35627250; PMCID: PMC9140531.
Lu G, Wen Q, Cui B, Li Q, Zhang F. Washed microbiota transplantation stopped the deterioration of amyotrophic lateral sclerosis: the first case report and narrative review. J Biomed Res. 2022 Jun 28:1-8. doi: 10.7555/JBR.36.20220088. Epub ahead of print. PMID: 35821195.
Cox LM, Calcagno N, Gauthier C, Madore C, Butovsky O, Weiner HL. The microbiota restrains neurodegenerative microglia in a model of amyotrophic lateral sclerosis. Microbiome. 2022 Mar 11;10(1):47. doi: 10.1186/s40168-022-01232-z. PMID: 35272713; PMCID: PMC8915543.
Zeng, Q., Shen, J., Chen, K. et al. The alteration of gut microbiome and metabolism in amyotrophic lateral sclerosis patients. Sci Rep 10, 12998 (2020).
Alonso R, Pisa D, Carrasco L. Searching for Bacteria in Neural Tissue From Amyotrophic Lateral Sclerosis. Front Neurosci. 2019 Feb 26;13:171. doi: 10.3389/fnins.2019.00171. PMID: 30863279; PMCID: PMC6399391.
Boddy SL, Giovannelli I, Sassani M, Cooper-Knock J, Snyder MP, Segal E, Elinav E, Barker LA, Shaw PJ, McDermott CJ. The gut microbiome: a key player in the complexity of amyotrophic lateral sclerosis (ALS). BMC Med. 2021 Jan 20;19(1):13. doi: 10.1186/s12916-020-01885-3. PMID: 33468103; PMCID: PMC7816375.
Sun J, Huang T, Debelius JW, Fang F. Gut microbiome and amyotrophic lateral sclerosis: A systematic review of current evidence. J Intern Med. 2021 Oct;290(4):758-788. doi: 10.1111/joim.13336. Epub 2021 Jul 8. PMID: 34080741.
Martin S, Battistini C, Sun J. A Gut Feeling in Amyotrophic Lateral Sclerosis: Microbiome of Mice and Men. Front Cell Infect Microbiol. 2022 Mar 11;12:839526. doi: 10.3389/fcimb.2022.839526. PMID: 35360111; PMCID: PMC8963415.
Nicholson K, Bjornevik K, Abu-Ali G, Chan J, Cortese M, Dedi B, Jeon M, Xavier R, Huttenhower C, Ascherio A, Berry JD. The human gut microbiota in people with amyotrophic lateral sclerosis. Amyotroph Lateral Scler Frontotemporal Degener. 2021 May;22(3-4):186-194. doi: 10.1080/21678421.2020.1828475. Epub 2020 Nov 2. PMID: 33135936.
Garofalo S, Cocozza G, Porzia A, Inghilleri M, Raspa M, Scavizzi F, Aronica E, Bernardini G, Peng L, Ransohoff RM, Santoni A, Limatola C. Natural killer cells modulate motor neuron-immune cell cross talk in models of Amyotrophic Lateral Sclerosis. Nat Commun. 2020 Apr 14;11(1):1773. doi: 10.1038/s41467-020-15644-8. PMID: 32286313; PMCID: PMC7156729.
Hertzberg VS, Singh H, Fournier CN, Moustafa A, Polak M, Kuelbs CA, Torralba MG, Tansey MG, Nelson KE, Glass JD. Gut microbiome differences between amyotrophic lateral sclerosis patients and spouse controls. Amyotroph Lateral Scler Frontotemporal Degener. 2022 Feb;23(1-2):91-99. doi: 10.1080/21678421.2021.1904994. Epub 2021 Apr 5. PMID: 33818222.
Andrew AS, Bradley WG, Peipert D, Butt T, Amoako K, Pioro EP, Tandan R, Novak J, Quick A, Pugar KD, Sawlani K, Katirji B, Hayes TA, Cazzolli P, Gui J, Mehta P, Horton DK, Stommel EW. Risk factors for amyotrophic lateral sclerosis: A regional United States case-control study. Muscle Nerve. 2021 Jan;63(1):52-59. doi: 10.1002/mus.27085. Epub 2020 Oct 18. PMID: 33006184; PMCID: PMC7821307.
Masrori P, Van Damme P. Amyotrophic lateral sclerosis: a clinical review. Eur J Neurol. 2020 Oct;27(10):1918-1929. doi: 10.1111/ene.14393. Epub 2020 Jul 7. PMID: 32526057; PMCID: PMC7540334.
谷禾健康
中风是一种常见的脑血管疾病,是一个重大的健康问题,每年影响全球超过 1500 万人。大约 70% 的中风是由脑缺血引起的,称为缺血性中风。它通常是由阻塞大脑血管的血凝块引起的。
缺血性中风一般有以下症状:
中风后,高达 50% 的患者会出现胃肠道并发症,包括便秘、吞咽困难、胃肠道出血和大便失禁等问题,胃肠道并发症会影响患者治疗效果不佳。
多项研究证实,中风患者存在肠道菌群失调。
肠道菌群可以调节疾病和健康之间的平衡,因为它们有可能产生各种代谢物(如,短链脂肪酸、胆汁酸、维生素、氨基酸和氧化三甲胺)。这些代谢物可能参与调节宿主的生理功能。其中氧化三甲胺增强血小板反应性和血栓形成可能性,这可能是缺血性中风的潜在致病因素。
我们之前的文章也有关于这方面的详细介绍:
肠道菌群 —— 中风的关键参与者
然而之前的研究较少说明,短链脂肪酸对缺血性中风有保护作用。短链脂肪酸是肠道微生物发酵膳食纤维的最终产物,它的存在加深了微生物与宿主之间的联系。
根据最近的研究,通过移植富含短链脂肪酸的粪便微生物群,缺血性中风的恢复得到了有效改善。短链脂肪酸可能作为肠道菌群和大脑之间的媒介,参与调节缺血性中风的预后。
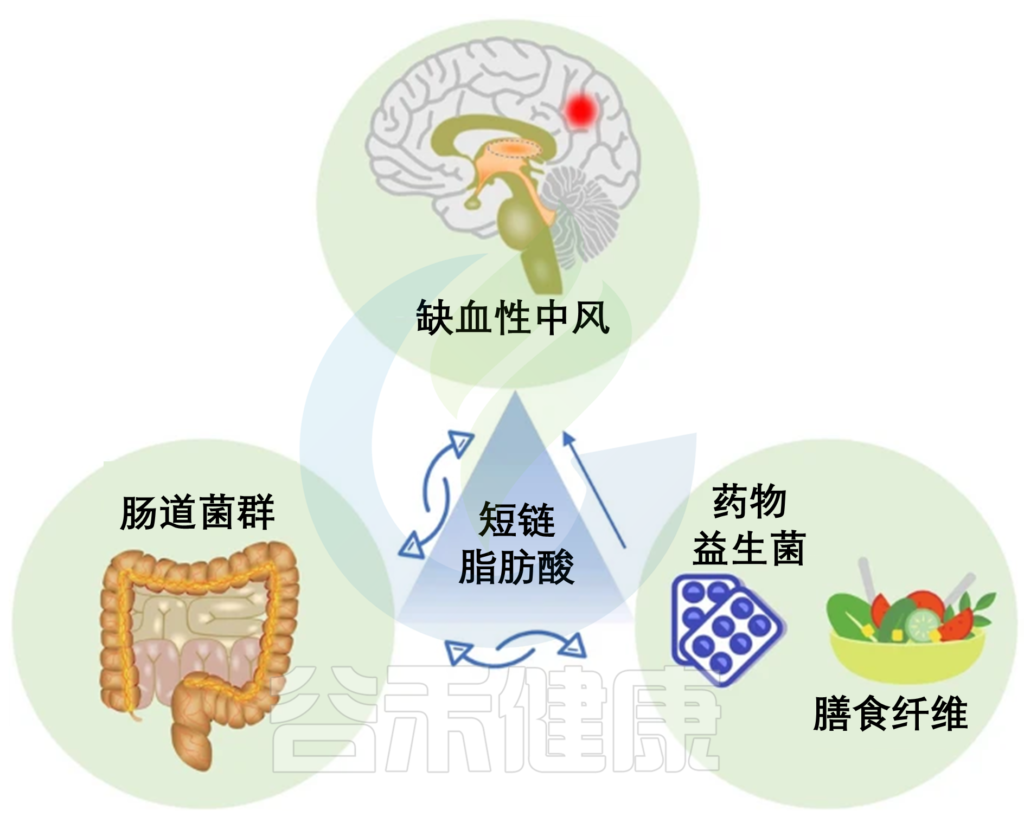
Fang Z, et al., Cell Mol Neurobiol. 2022
本文主要介绍关于缺血性中风和肠道菌群之间关系的研究,概述了短链脂肪酸作为它们之间桥梁的作用及其潜在机制,讨论了短链脂肪酸介导的治疗措施,如饮食、膳食补充剂(益生菌和益生元)、粪菌移植和药物治疗缺血性脑损伤的有益效果。
随着临床证据的不断增加,肠道菌群可能是中风的一个关键易感因素。
↓↓↓ 发现中风与肠道菌群关联的研究:
最早的一项横断面研究报告说,与健康、无症状的对照组相比,中风患者的条件致病菌更多。这种生态失调与中风的严重程度有关。
分析粪便中的有机酸浓度发现,中风患者的乙酸浓度显着降低,而戊酸浓度显着升高。然而,中风患者的总有机酸浓度降低。
这些研究表明:
中风会影响肠道微生物的多样性,并导致微生物代谢物发生相应的变化。
有了这个线索后,研究人员开始进一步探索中风、肠道菌群和短链脂肪酸之间的相关性。
↓↓↓ 进一步研究表明:中风患者的产短链脂肪酸菌及短链脂肪酸水平都较低
在大脑中动脉闭塞期间,小鼠的短链脂肪酸水平较低,尤其是丁酸盐。
研究人员认为,急性缺血性中风患者肠道菌群失调的特征是:产短链脂肪酸菌的低丰度和粪便短链脂肪酸的低水平,尤其是那些中风较严重的患者,短链脂肪酸水平与严重程度之间可能存在负相关,也就说,短链脂肪酸水平越低,中风严重程度越高。
↓↓↓ 然而事情没有这么简单。出现矛盾的是:
一项临床研究发现,在缺血性中风中,随着个体产生短链脂肪酸的增加,肠道菌群的调节异常。但由于没有相应地测量短链脂肪酸水平,因此无法确定这种失调是否会导致粪便短链脂肪酸水平发生实质性变化。
此外,肠杆菌科(条件致病菌)的扩张也是中风患者肠道菌群失调的主要表现之一,但肠杆菌科也能产生乙酸盐。
因此,中风患者短链脂肪酸低,可能不仅仅是由产短链脂肪酸菌的减少引起的,可能部分原因是不同菌群的协同效应。
除了疾病本身的进展,合并其他疾病(例如高血压、糖尿病)、年龄、饮食、吸烟和其他危险因素可能会加剧对缺血性脑损伤的病理生理反应,包括神经炎症。因此,肠道菌群对中风易感性和恢复的贡献是一个不断增长的研究领域。例如,高血压 、糖尿病、肥胖症和动脉粥样硬化,所有已知的中风危险因素都与肠道菌群密切相关。
↓↓ 肠道菌群与中风风险关联的研究:高风险人群条件致病菌多,产丁酸盐菌少
一项横断面研究评估了肠道菌群与中风风险之间的关联,发现中风高风险人群肠道中条件致病菌(例如肠杆菌科和韦荣氏菌科)的比例显着高于低风险人群。此外,产丁酸盐细菌的消耗和粪便丁酸盐水平低是中风风险增加的潜在因素。
▸ 中风后认知障碍:梭杆菌↑ 肠杆菌科↑
中风后认知障碍(PSCI)是中风后遗症之一。已有研究表明,PSCI患者肠道内梭杆菌含量增加,同时粪便中短链脂肪酸缺乏。研究人员进一步构建了基于肠道菌群和短链脂肪酸的PSCI风险预测模型,该模型能够准确预测中风发作3个月或更长时间后的PSCI。
另一项研究发现,与中风后非认知障碍组相比,PSCI组的肠杆菌科细菌增多。这些革兰氏阴性病原体可能会促进神经系统的炎症变化。此外,患有其他中风后共病精神障碍(如抑郁症和情感障碍)的患者的肠道菌群也可能发生相应的变化。
▸ 中风后吞咽困难:管饲易引发胃肠道不良反应
大约65%的中风患者表现出吞咽困难。为了降低中风后吞咽困难导致吸入性肺炎和营养不良的风险,经常使用管饲代替口服食物。
然而,最近的一项研究表明,当吞咽改善,恢复最初的口服摄入量时,中风患者的肠道菌群发生了变化。这可能是因为与肠内营养相比,口服食物的膳食纤维含量更高。
此外,与早期口服食物的患者相比,长期管饲患者接受治疗的时间更长,感染风险更高。长期肠内营养管理可能会产生许多胃肠道不良反应(例如腹泻、便秘、胃食管反流)。
▸ 为什么中风患者表现出对感染的易感性增加(肺炎和尿路感染等)?
——肠道通透性增加、细菌易位
在中风后感染的患者中检测到的大多数微生物是通常存在于肠道中的常见共生细菌,这可能与中风后肠道通透性增加以及共生细菌的易位和传播有关。值得一提的是,肠道菌群组分的改变可能会增加菌血症并改变宿主的免疫反应。
——产丁酸菌减少
此外,在一项前瞻性病例对照研究中,在中风患者住院24小时内,产丁酸的细菌很少,这可能会增加中风后感染的风险。
尽管肠道菌群和短链脂肪酸可能对大多数中风后并发症有显著影响,但迄今为止尚未对其潜在机制和治疗应用进行研究。
▸ 肠道菌群失调具体通过什么与中风产生关联?
随着临床证据的增加,中风引起的肠道菌群失调已逐渐被解开。然而,这种微生物失调可能是由肠道菌群-肠-脑轴中持续积累的“自上而下”信号引起的,而不是突然发作。
中风中的自下而上和自上而下的信号
Battaglini D, et al., Front Neurol. 2020
脑缺血会导致自主神经系统或 HPA 轴的紊乱,增加肠道通透性并改变肠道微环境。例如,条件致病菌积累,内毒素水平增加,产生短链脂肪酸的细菌耗尽,短链脂肪酸水平下降。反过来,这种改变会加剧中风或脑损伤并影响患者预后。

Fang Z, et al., Cell Mol Neurobiol. 2022
一般来说,微生物产生的短链脂肪酸可能与肠道菌群-肠-脑轴一起参与中风的病理生理学,短链脂肪酸影响中风的潜在机制将在后面章节讨论。
在缺血再灌注损伤和永久性缺血的情况下,神经炎症是中风进一步进展的关键因素。
炎症过程始于血管内。当缺氧发生时,活性氧(ROS)产生过多,从而激活补体、血小板和内皮细胞。内皮细胞中的氧化应激(ROS)会降低NO的生物利用度,从而间接影响血小板活性。
在脑缺血期间,未刺激的T细胞可能通过IFN-γ和ROS促进组织损伤。γδT细胞被小胶质细胞和巨噬细胞释放的IL-23激活,产生细胞毒性细胞因子IL-17,参与急性缺血性脑损伤。
然而,小胶质细胞和巨噬细胞也能促进Treg的成熟,分泌抗炎因子IL-10,抑制Th1和Th2反应,介导神经保护作用。
在健康条件下,调节性T细胞(Treg)和效应性T细胞处于动态平衡状态。而在缺血性中风中,这种平衡受到干扰。
中风后诱导的炎症反应可增加血脑屏障的通透性和脑水肿,扩大脑梗死面积,进一步加重缺血性脑损伤。
因此,研究人员继续测试免疫调节策略在中风患者中的治疗潜力。
肠道微生物群可能参与了中风的免疫调节。最近对啮齿类动物的两项研究表明,中风后的微生物群失调会导致效应T细胞(γδT细胞)从肠道迁移到大脑外的脑膜,从而加剧缺血性脑损伤。
中风后恢复健康的微生物成分和应用抗生素诱导微生物失调都可以减轻神经炎症,减少缺血性脑损伤。这一过程与Treg细胞的启动密切相关。
总体而言,肠道菌群可以调节宿主免疫系统,从而改善缺血性脑损伤。
对肠道菌群介导的免疫机制的研究仍处于起步阶段。然而,在这一复杂现象的背后,存在着通过生产短链脂肪酸的可能性。
在了解短链脂肪酸在中风中发挥作用之前,我们先来看下,短链脂肪酸是如何参与宿主免疫系统发挥作用。
短链脂肪酸是一种潜在的免疫调节因子,与各种免疫细胞相互作用,介导全身炎症反应。短链脂肪酸也影响小胶质细胞的结构和功能完整性,并激活与神经炎症相关的小胶质细胞。
丁酸盐:研究最多的是丁酸盐,具有抗炎作用。
丙酸盐:会引起炎症,但丙酸盐的这些数据可能仍有一定争议,组织特异性可能是一种解释。
乙酸盐:可以通过抑制炎症信号通路来减轻炎症反应。
短链脂肪酸在免疫和炎症中的作用
Yao Y, et al., Crit Rev Food Sci Nutr. 2022
在肠道上皮细胞中,短链脂肪酸可通过被动扩散和转运进入肠道组织。转运蛋白包括MCT1、MCT4、SMCT1和SMCT2。此外,短链脂肪酸还能激活肠上皮细胞中的G蛋白偶联受体(GPRs),引起一系列下游反应。短链脂肪酸可以调节许多免疫细胞的活动,参与宿主免疫系统的调节。
短链脂肪酸调节炎症的机制
Yao Y, et al., Crit Rev Food Sci Nutr. 2022
在巨噬细胞、中性粒细胞和树突状细胞中,短链脂肪酸可以通过G蛋白偶联受体激活MAPK通路,抑制β – arrestin2/NF-κ b通路,抑制环腺苷一磷酸(cAMP)的合成,促进钙离子(Ca2+)进入细胞核,从而调节与炎症和免疫相关的基因表达。此外,短链脂肪酸可通过被动扩散进入细胞,抑制线粒体/AMPK/mTOR通路,抑制组蛋白去乙酰化,通过促进MKP表达抑制MAPK通路。
↓↓↓ 粪菌移植研究:是什么改善中风小鼠脑损伤并提高存活率?
一项关于小鼠粪菌移植的研究发现,通过灌胃改变年轻中风小鼠(2-3个月)的微生物群,使其与老年小鼠(18-20个月)的微生物群相似,会增加死亡率和全身炎症反应。
相比之下,用年轻小鼠的肠道菌群对老年小鼠进行定植可以改善脑损伤并提高存活率。
老年小鼠的粪便短链脂肪酸水平和拟杆菌与厚壁菌的比率(B:F)显著低于年轻小鼠。
↓↓↓ 进一步研究:短链脂肪酸对缺血性中风具有保护作用
研究人员将富含短链脂肪酸的粪便微生物群移植到中风小鼠体内,可以减少神经功能缺损,消除脑水肿,减少梗死体积。有趣的是,通过直接灌胃补充丁酸盐也可获得类似的有益效果。因此,短链脂肪酸可能是影响中风恢复的关键代谢物。
↓↓↓ 进一步研究:微生物源性短链脂肪酸影响中风的潜在机制是什么?
Sadler等人提供了第一个证据,他们通过向中风小鼠的饮用水中添加短链脂肪酸来增加其循环短链脂肪酸浓度。
这种方法可以改善运动功能并调节中风后突触可塑性,但不会影响原发性脑梗死体积。
更重要的是,在没有淋巴细胞的情况下,即使补充了短链脂肪酸,小胶质细胞的数量和形态也没有显著改变。这表明淋巴细胞可能介导短链脂肪酸对小胶质细胞的调节作用。
另外的研究人员在中风小鼠中更直接地移植了四种产生短链脂肪酸的细菌和菊糖(一种增加产生短链脂肪酸的益生元)。研究发现,短链脂肪酸可增强肠道完整性,扩张肠道和大脑中的调节细胞(Treg),并减少中风后IL-17+γδT细胞在大脑中的浸润。
尽管小胶质细胞缺乏短链脂肪酸受体,但在小胶质细胞中发现了单羧酸转运蛋白的表达。这可能是一种小胶质细胞调节机制,不涉及短链脂肪酸受体,这需要在未来进一步验证。
★ 短链脂肪酸参与T细胞的极化和迁移
现有证据表明,T细胞可以通过分泌促炎和抗炎细胞因子来调节M1(促炎)和M2(抗炎)小胶质细胞的平衡。
此外,短链脂肪酸还促进了T细胞在生理条件下分化为效应T细胞,主要是通过增加Treg的数量和功能。有趣的是,在无菌小鼠中进行了中风后菌群再定植,这显著地诱导了Th1和Th17的极化。
另一方面,抗生素治疗导致Treg扩增和Th17细胞减少。因此,有理由怀疑短链脂肪酸参与了由肠道菌群失调诱导的T细胞极化过程。
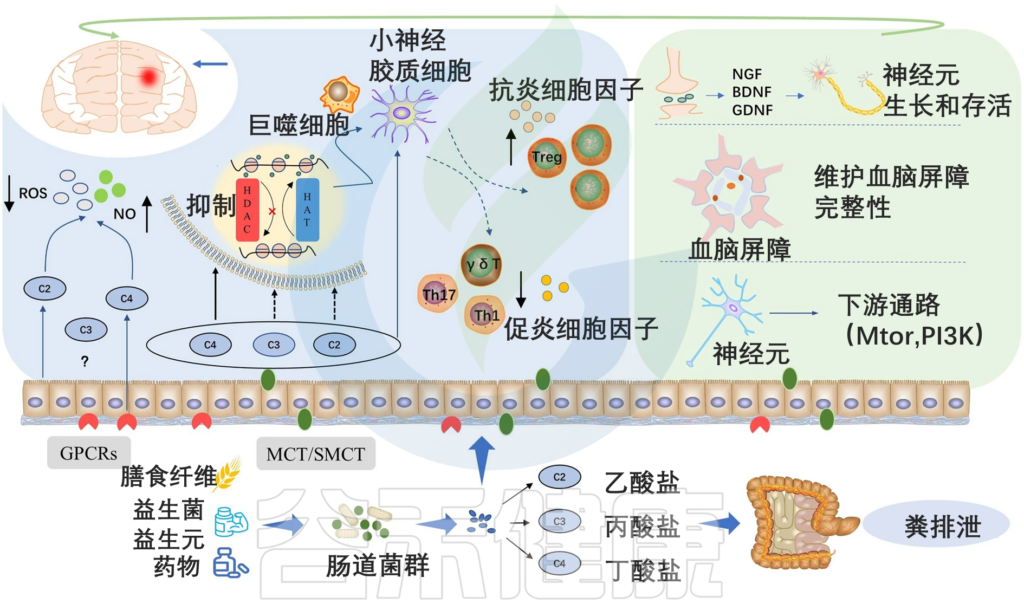
Fang Z, et al., Cell Mol Neurobiol. 2022
总之,短链脂肪酸可以诱导T细胞极化,从而影响免疫系统,从而改善缺血性脑损伤。此外,尽管没有直接证据,但短链脂肪酸可能参与T细胞向大脑的迁移。
★ 短链脂肪酸激活GPCR
GPCR与细胞周围的化学物质结合,包括气体、光敏化合物、激素、趋化因子和神经递质,并激活一系列细胞内信号通路,最终发挥不同的生理作用。
注:G蛋白偶联受体(GPCR)是一类由七个α螺旋组成的膜蛋白受体。
未知配体的两个GPCR(GPR41和GPR43)因与短链脂肪酸结合而改名为游离脂肪酸受体(分别为FFAR3和FFAR2)。
FFAR2更有可能结合较短的脂肪链(如乙酸盐),FFAR3优先结合较长的脂肪链,包括丙酸盐、丁酸盐和戊酸盐。此外,G蛋白偶联受体109A也可被丁酸和β-d-羟基丁酸激活。
短链脂肪酸通过激活肠上皮细胞上的GPR41和GPR43,导致快速丝裂原激活蛋白激酶信号、趋化因子和细胞因子。但到目前为止,只有少数研究探索了短链脂肪酸激活GPCR对中风有益作用的机制。
目前的一项研究表明,与乙酸盐和丙酸盐相比,经鼻给予低剂量丁酸钠(7.5 mg/kg)可显著减少大脑中动脉阻塞后的梗死体积,改善神经功能。
这可能与丁酸钠通过GPR41/Gβγ激活PI3K/Akt并减轻大脑中动脉阻塞后神经细胞死亡的机制密切相关。值得一提的是,丁酸盐和乙酸盐可以通过抑制氧化应激增加NO的生物利用度。有趣的是,丁酸盐的这种保护作用似乎取决于GPR41/43的激活,而乙酸盐的这种作用似乎独立于GPCR。
★ 短链脂肪酸抑制HDAC活性
组蛋白脱乙酰酶(HDAC)是一类修饰和调节染色体结构和基因表达的蛋白酶。在细胞核中,组蛋白乙酰化和组蛋白去乙酰化处于动态平衡,并由组蛋白乙酰转移酶和组蛋白去乙酰化酶共同调节。
研究表明,细胞内短链脂肪酸可以抑制HDAC活性,并且丁酸盐相对于其他短链脂肪酸具有较强的HDAC抑制作用。相比之下,乙酸盐几乎没有抑制作用。
大多数证明短链脂肪酸介导的HDAC抑制对中风影响的证据来自丁酸钠(SB)的动物研究。例如,在永久性缺血的大鼠模型中,皮下注射丁酸钠(300 mg/kg)可减少梗死体积,抑制小胶质细胞激活,并改善大鼠的运动、感觉和反射能力。
此外,研究人员发现SB在体外改变小胶质细胞中组蛋白3-赖氨酸9-乙酰化(H3K9ac,一种由HDAC调节的组蛋白修饰)的基因启动子。已经在小鼠中证实,SB可以通过表观遗传调节减少小胶质细胞介导的神经炎症,H3K9ac水平的上调可能是观察到的效应的一个重要原因。
令人惊讶的是,丁酸钠对脑缺血的改善作用在不同种类的大鼠和不同的给药方式下没有发生质的改变。除了减轻成人中风模型中的脑损伤,SB在新生儿缺氧-缺血中也具有潜在的神经保护作用。
除了小胶质细胞激活的表观遗传调节外,短链脂肪酸还具有与抑制HDAC活性相关的其他神经保护和神经营养作用。
例如,它们通过抑制诱导Treg细胞产生的HDAC,独立于游离脂肪酸受体调节mTOR-S6K通路。短链脂肪酸还上调神经递质和神经营养因子,如神经生长因子(NGF)、胶质细胞源性神经营养因子(GDNF)和脑源性神经营养因子(BDNF)的表达。
总之,短链脂肪酸目前可能通过影响T细胞极化、与FFAR相互作用以及抑制HDAC活性来影响中风预后。
然而,目前还没有研究探索短链脂肪酸在人类中的这些作用机制。在进一步探索短链脂肪酸影响中风的其他机制(免疫途径、内分泌途径和其他体液途径)的同时,研究短链脂肪酸作为调节剂在应用膳食短链脂肪酸补充剂、益生菌/益生元、FMT(恢复肠道微生物组成)的人类中风患者中的有效性和安全性将是未来研究的关键。
不同的饮食习惯可能会对肠道菌群产生不同的影响。例如,长期摄入西方饮食(高脂肪、高糖、低纤维)可能会减少肠道菌群多样性。饮食中富含复合碳水化合物的人的肠道菌群种类增加。生产短链脂肪酸所需的底物(膳食纤维)主要来源于饮食。
现在有大量证据表明,增加膳食纤维摄入可以降低心血管疾病(包括中风)的风险,这种有益的效果可能与循环短链脂肪酸水平的增加有关。
换句话说,增加膳食纤维的摄入可能是预防中风的有效方法之一。适当减少钠摄入量通常会对心血管系统产生有益影响,例如降低血压。此外,循环短链脂肪酸水平的增加可能维持心血管健康。
益生菌和益生元对宿主健康的益处已得到广泛研究和明确界定。益生菌中乳酸杆菌、丁酸梭菌Clostridium butyricum、地衣芽孢杆菌对中风的有益作用已在啮齿动物模型中得到证实。
最近一项针对肥胖女性的研究显示,在摄入益生菌混合物(菊粉和低聚果糖的混合物)长达三个月后,产丁酸菌显著富集。有趣的是,功能型大麦可以增加丁酸产生菌的数量,并增加肠道中的丁酸水平。
乳果糖(由果糖和半乳糖组成)是一种常见的益生元,在结肠中被肠道菌群转化为低分子量有机酸,并通过保持水分软化大便,常用于治疗中风后便秘。尽管乳果糖不是一种典型的益生元,但体外研究发现,它可以剂量依赖性地增加肠道中短链脂肪酸的水平(每天5克乳果糖,持续5天,可以产生完全的益生元效应)。
一项研究发现,乳果糖(20 g/kg)干预6周后,小鼠的肠道和血清短链脂肪酸水平发生改变。有趣的是,最近的一项研究发现,补充乳果糖可改善中风的功能预后,并降低中风后的炎症反应。
为了更好地利用益生菌和益生元之间的协同作用,创建了产品“合生元”,它是活性微生物(益生菌)和基质(益生元)的混合物。
一项实验研究发现菊糖和产短链脂肪酸菌之间有协同作用;与单独使用菊糖或单独使用产短链脂肪酸的菌相比,使用产短链脂肪酸菌和菊糖可改善中风后小鼠的神经功能缺损评分和行为结果。
此外,近年来的证据表明,益生菌对人体的影响不一定与活性微生物直接相关,而是活性微生物的代谢产物或细菌成分(后生物)至关重要-短链脂肪酸,一种被肠道菌群分解的植物多糖产品。
FMT可能是未来改善中风的潜在选择。然而,现有证据仍然很少,通过动物研究观察到的比较结果:移植富含短链脂肪酸的粪便微生物群可以改善中风后的脑损伤。
为了更好地阐明FMT在缺血性中风中的作用,有必要进一步扩大对小鼠FMT的研究,以探索有利于脑损伤恢复的肠道微生物群组成,并评估其安全性。在阐明FMT的潜在益处后,开始将其转化为人体试验。
除了可以影响肠道菌群和短链脂肪酸的抗生素,中风患者常用的药物阿托伐他汀可以逆转微生物组成,增加粪便丁酸水平,并增强中风患者的肠道屏障功能。这表明肠道微生物群和短链脂肪酸可能参与阿托伐他汀的抗炎作用。然而,其他常用于治疗中风的药物(如抗血小板和抗高血压药物)是否也发挥类似作用仍有待研究。
白藜芦醇是一种潜在的HDAC抑制剂,可增加产短链脂肪酸菌的数量。此外,白藜芦醇和丙戊酸钠(一种结构类似于丁酸盐的短链脂肪酸)的联合使用,减轻了缺血性中风的脑损伤。
关于白藜芦醇,详见:如何调节肠道菌群?常见天然物质、益生菌、益生元的介绍
总的来说,药物会引起肠道菌群的改变。这种改变对中风的发展是有益的还是有害的,对中风的预后是重要的还是无关紧要的,都需要根据药物的类型进行进一步的探索和发现。
本文讨论了有关短链脂肪酸作为肠道菌群和缺血性中风之间桥梁,是如何影响中风的,通过机制的阐明,发现它们可以通过调节饮食、饮食补充、FMT等干预措施,调节缺血性中风的预后。
虽然短链脂肪酸和缺血性中风之间的联系在动物研究中逐渐得到巩固,但人类研究并没有同步进行。需要进一步扩大研究,以探索特定肠道菌群或短链脂肪酸的长期益处,并随后扩大转化为人体试验。
短链脂肪酸作为缺血性中风的潜在调节剂,为缺血性中风的菌群靶向治疗开辟了新的可能性。
主要参考文献:
Fang Z, Chen M, Qian J, Wang C, Zhang J. The Bridge Between Ischemic Stroke and Gut Microbes: Short-Chain Fatty Acids. Cell Mol Neurobiol. 2022 Mar 28. doi: 10.1007/s10571-022-01209-4. Epub ahead of print. PMID: 35347532.
Battaglini D, Pimentel-Coelho PM, Robba C, et al. Gut Microbiota in Acute Ischemic Stroke: From Pathophysiology to Therapeutic Implications. Front Neurol. 2020;11:598. Published 2020 Jun 25. doi:10.3389/fneur.2020.00598
Pluta R, Januszewski S, Czuczwar SJ. The Role of Gut Microbiota in an Ischemic Stroke. Int J Mol Sci. 2021 Jan 18;22(2):915. doi: 10.3390/ijms22020915. PMID: 33477609; PMCID: PMC7831313.
Zeng X, Gao X, Peng Y, et al. Higher Risk of Stroke Is Correlated With Increased Opportunistic Pathogen Load and Reduced Levels of Butyrate-Producing Bacteria in the Gut. Front Cell Infect Microbiol. 2019;9:4. Published 2019 Feb 4. doi:10.3389/fcimb.2019.00004
Roy-O’Reilly M, McCullough LD. Age and Sex Are Critical Factors in Ischemic Stroke Pathology. Endocrinology. 2018;159(8):3120-3131. doi:10.1210/en.2018-00465