-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
蚊子可能不只是在“闻”你的汗。
它甚至可能在“闻”你的营养状态。
为什么有些人走到哪里都被蚊子追着咬,有些人却像隐身一样?一到夏天,“为什么蚊子偏偏咬我”就成了经久不衰的话题。
编辑
我们平时说招蚊子,很容易想到血型、体温、出汗,或者笼统地归结为玄乎的“体质”。但从蚊子的角度看,它其实是利用二氧化碳、热量和人体气味来精准锁定宿主的。而“人体气味”绝不是一个简单的变量——它是宿主自身代谢、皮脂、汗液以及皮肤微生物共同发酵出的一套复杂的“生化信号”。
一个有趣的猜想是,我们身体营养状态的变化,会不会通过皮肤菌群和挥发性代谢物,进一步影响蚊子的选择?
近日,来自清华大学、复旦大学等机构的研究团队在《Cell Research》(IF=31.1)发表研究发现,营养不足会让你对蚊子产生致命的吸引力。
研究表明,营养不良会导致宿主的皮脂腺功能减退,使皮肤表面的“天然抗菌防线”(游离脂肪酸)大幅减少。失去压制后,特定皮肤共生菌野蛮生长,挥发出大量的庚醛、辛醛和壬醛。正是这些散发着特殊气味的挥发物,精准锁定了蚊子的嗅觉雷达。
编辑
本文我们来深入了解这项研究,它不仅破解了“招蚊体质”,更为我们理解虫媒传染病提供新的视角——疾病传播不只取决于病原体和媒介,宿主自身的生理状态及其塑造的微生态,也可能成为影响传播效率的重要变量。
四种疾病媒介蚊虫,都表现出了相似偏好
研究者首先构建了营养不足小鼠模型,并使用三笼式嗅觉仪和双通道嗅觉仪,让蚊虫在营养正常和营养不足的小鼠之间进行选择。
实验测试了四种常见疾病媒介蚊虫:
埃及伊蚊(Aedes aegypti)
白纹伊蚊(Aedes albopictus)
致倦库蚊(Culex quinquefasciatus)
斯氏按蚊(Anopheles stephensi)
编辑
结果非常一致:四种蚊子都更倾向于营养不足的小鼠。
这意味着,这种现象可能并不局限于某一种蚊虫。
关键在气味
蚊子寻找宿主时,会综合使用体温、二氧化碳和挥发性气味等线索。
研究者因此继续比较两组小鼠。结果发现,营养不足小鼠与正常小鼠之间,体温和二氧化碳排放没有明显差异。
但当研究人员在嗅觉实验装置中加入除味装置,将宿主释放的挥发性物质从气流中去除之后,蚊子对营养不足小鼠的偏好消失了。
这说明,导致蚊子“区别对待”的核心因素,很可能是宿主气味发生了变化。
于是,问题进一步变成:营养不足的小鼠,到底多了什么气味?
从93种挥发性化合物中,锁定三种醛
研究者利用综合二维气相色谱—飞行时间质谱(GC×GC-TOFMS),分析营养正常和营养不足小鼠释放的挥发性有机物(volatile organic compounds,VOCs)。
一共检测到 93 种化合物。
进一步筛选后,研究人员利用触角电位技术(electroantennography,EAG),直接检测蚊虫触角对这些化合物的反应。最终,有三种挥发性醛类脱颖而出:
庚醛(heptanal)
辛醛(octanal)
壬醛(nonanal)
这三种物质均能在埃及伊蚊、白纹伊蚊、致倦库蚊和斯氏按蚊中引起明显的触角电生理反应,而且呈现一定的剂量依赖关系。
营养不足小鼠释放的三种醛明显增多
接下来,研究者使用固相微萃取—气相色谱质谱(SPME-GC/MS)对三种醛进行绝对定量。结果显示,营养不足小鼠释放的庚醛、辛醛和壬醛,约为正常小鼠的2-4倍。
编辑
当研究人员按照营养不足小鼠的浓度比例,人工配置这三种醛,再涂到已经去除皮肤菌群的小鼠身上时,蚊子同样表现出了更明显的趋向。
也就是说,这三种挥发性物质并不只是“伴随变化”,它们本身就能够驱动蚊虫行为。
动物实验之后,研究团队进一步招募了营养不足者和健康对照。
营养不足者的皮肤气味更吸引蚊子
研究中的营养不足者具有长期营养不足史,成年人BMI低于18 kg/m²,同时蛋白质摄入水平较低。最终有 24 名营养不足者和24 名健康对照参与蚊虫趋向实验,并按照性别、年龄和地区进行匹配。
为了判断蚊子究竟是不是被“气味本身”吸引,研究人员先让参与者在前臂佩戴尼龙套24小时,收集皮肤释放的挥发性物质。随后,将这些带有不同人体气味的尼龙套置于37 ℃加热装置上,让气味重新释放,再送入嗅觉仪供蚊子选择。
结果显示:即使没有真人参与,来自营养不足者的气味样本,对蚊子的吸引力明显高于健康人群。
为进一步验证,研究人员又将营养不足者和健康对照的气味样本分别置于同一名健康志愿者的两侧前臂,使两边的人体背景尽量一致,再利用双通道嗅觉仪让蚊子进行选择。结果依然相同:携带营养不足者气味的一侧更受蚊子偏爱。
人体中,同样是庚醛、辛醛和壬醛升高
研究者随后从24对受试者中随机选择12对进行挥发性代谢物分析。结果显示,营养不足者释放的庚醛、辛醛和壬醛均明显增多,其释放量大约达到健康人群的3-5倍。
注:有意思的是,庚醛、辛醛和壬醛并不是营养不足者特有的异常代谢物,它们本来就是人体皮肤挥发组的一部分。真正发生变化的,更可能是释放量和不同VOCs之间的比例。这也意味着,蚊子识别的可能是一套具有特定浓度和比例的气味组合。
研究者按照健康组和营养不足组实际检测到的比例分别配置三种醛,并涂在同一个人的两侧前臂上进行比较。结果再次显示,模拟“营养不足气味”的一侧吸引了更多蚊子。
至此,小鼠和人体实验得到了一致结果:
营养不足会改变皮肤挥发性气味谱,其中庚醛、辛醛和壬醛是重要的蚊虫吸引信号。
编辑
但这里还有一个更关键的问题。这些挥发性醛,到底是谁产生的?
而当研究人员去除皮肤菌群之后,发现营养不足小鼠和正常小鼠之间原本明显的蚊虫吸引差异消失了;与此同时,庚醛、辛醛和壬醛的释放也几乎被消除。
这说明,皮肤微生物是这些蚊虫吸引性醛类的重要来源。
葡萄球菌和链球菌增加
进一步检测皮肤微生物后,研究者发现,营养不足小鼠皮肤上可培养细菌数量超过正常组的10倍。
16S rDNA测序则发现,其中葡萄球菌属(Staphylococcus)和链球菌属(Streptococcus)明显增加。
研究人员从小鼠皮肤中分离出多种葡萄球菌,包括:
Staphylococcus sciuri
Staphylococcus xylosus
Staphylococcus pseudoxylosus
体外培养发现,这些细菌都能够产生庚醛、辛醛和壬醛。
注:从化学结构上看,这三种物质都属于直链脂肪醛,与皮肤表面的脂质代谢关系密切。皮脂中含有大量甘油三酯、脂肪酸和蜡酯,而葡萄球菌等皮肤微生物本身具有脂酶等脂质代谢能力,可以水解、利用和改造宿主提供的脂质底物。近年来的研究也越来越倾向于把皮肤看成一个“脂质驱动的微生态系统”:宿主提供脂质,微生物再对这些脂质进行二次加工,从而产生新的代谢产物。
营养不足后,到底是“产醛菌”变多了,还是同样的细菌在不同皮脂底物环境下改变了代谢通量,抑或两者同时发生?本研究已经证明相关菌株能够产醛,但具体是哪类脂质底物、哪些微生物酶以及哪条代谢路径贡献最大,还有待进一步解析。
当研究者再把这些细菌涂到小鼠皮肤上时,小鼠对多种蚊子的吸引力随之增强。
人体结果也非常相似
营养不足者皮肤上的可培养细菌同样显著增加,葡萄球菌属和链球菌属丰度升高。
研究者分离出的Staphylococcus epidermidis、Staphylococcus hominis、Staphylococcus warneri、Staphylococcus capitis、Streptococcus salivarius等,在模拟人体汗液和皮脂环境中,也都能够产生上述挥发性醛类。
编辑
那么问题来了,为什么营养不足会让皮肤菌群大量增长?
营养不足损伤了皮脂腺功能
研究者对小鼠皮肤进行了转录组、组织学和脂质分析。
结果发现,营养不足小鼠的皮肤层明显变薄,皮脂腺形态和发育出现异常,皮脂腺面积减小,皮脂含量也显著下降。
这一步很重要。因为皮脂并不只是我们日常理解中的“油”。皮脂中包含多种具有抗菌活性的游离脂肪酸,是维持皮肤微生态稳态的重要组成部分。
多种具有抗菌作用的游离脂肪酸减少
研究人员进一步进行LC-MS/MS检测发现,营养不足小鼠皮肤表面的多种游离脂肪酸下降,包括肉豆蔻油酸(myristoleic acid)、顺式-10-十五碳烯酸(cis-10-pentadecenoic acid)、丁酸、丙酸等。
体外抑菌实验显示,其中部分脂肪酸能够明显抑制此前筛出的葡萄球菌。
在人群样本中也观察到类似现象:营养不足者皮肤表面多种游离脂肪酸含量降低。
正常情况下,皮脂腺分泌的脂质和游离脂肪酸,会对皮肤微生物形成持续的选择压力。
当营养不足导致皮脂腺功能下降、抗菌脂肪酸减少后,这层“生态约束”被削弱,一部分细菌便获得了更多增殖空间。
于是:
皮脂腺功能下降 → 抗菌脂肪酸减少 → 葡萄球菌等扩增 → 挥发性醛增加。
研究者还进一步通过干预验证了这条链路:给营养不足小鼠补充相应脂肪酸后,皮肤细菌数量和三种挥发性醛均下降,对蚊虫的吸引力也随之降低。
营养不足还会提高登革病毒感染和传播效率
如果营养不足只是让人更“招蚊子”,这件事本身就已经够烦了。被叮之后的红肿、瘙痒,常常让人忍不住反复抓挠;尤其到了蚊虫活跃的季节,几只蚊子就足以让人坐立不安,甚至影响休息。
但研究者进一步发现,它还可能同时影响病毒传播的另一端。
在登革病毒2型(DENV2)感染实验中,营养不足小鼠感染后体内病毒载量更高。
与此同时,蚊子在营养不足小鼠身上的吸血率更高;这些蚊子吸血以后,体内DENV2的病毒载量和感染率也更高。
“蚊子-宿主-蚊子”传播循环被进一步放大
研究人员随后设计了一个更接近群体传播的实验。
编辑
他们分别建立营养不足小鼠占比为0%、10%和60%的三个群体,再让携带DENV2的埃及伊蚊进入其中。
结果显示,在营养不足个体占比达到60%的群体中,小鼠病毒载量更高;随后前来吸血的未感染蚊虫,其吸血率和DENV2感染率也更高。
编辑
蚊子挑人,挑的不只是“体味”,还有营养状态在皮肤菌群上留下的痕迹。这项研究揭示了,营养不足削弱皮肤的脂质防线,改变皮肤微生态,进而改变气味,让宿主更容易成为蚊子的目标。
看似是蚊子的偏爱,背后却是营养、皮肤屏障与微生物共同作用的结果。 营养不良带来的风险,可能不只在于削弱身体抵御感染的能力,也包括更容易成为蚊虫叮咬的目标。
小编点评
我们常说“弱肉强食”,而在微观层面,大自然的设计更为冷酷,疾病往往会寻找最脆弱的缺口进行精准打击。
这不仅是一项关于蚊子口味的趣味发现,更是对现代公共卫生防御体系的启示。未来值得期待的是防控思路的拓展:除了阻断蚊虫叮咬,能否通过改善营养、维护皮肤微生态,减少宿主易受叮咬的条件?
过去,医学与公共卫生多将视角局限于宿主免疫与病原体本身;而未来,精准的菌群检测与微生态代谢物图谱,将成为撬动疾病预防与健康评估的底层杠杆。
当我们能通过便携、高精度的微生态检测,在分子与菌群丰度层面提前捕捉微生态失调与代谢异常的微弱信号,传统的“被动驱蚊、发病后治疗”模式将重构。
菌群检测也不局限于肠道,皮肤、呼吸道等更细分的微生态测序与代谢物分析,将为精准评估个体的营养储备、免疫机能乃至环境适应力,提供数据支撑。
不仅是公共卫生,这套认知同样能切实赋能大众的个护与美业。当我们量化皮肤表面的微生态与代谢状态时,针对性的微生态护肤、精准营养干预将变得有据可依。
主要参考文献
Wang M, Song X, Zhu Y, Niu J, Wang G, Wang Y, Xiao H, Lei D, Wu T, Liu L, Wang P, Wang J, Cheng G. Undernutrition enhances host attractiveness to mosquitoes and transmission of mosquito-borne diseases. Cell Res. 2026 Sep 16.
谷禾健康
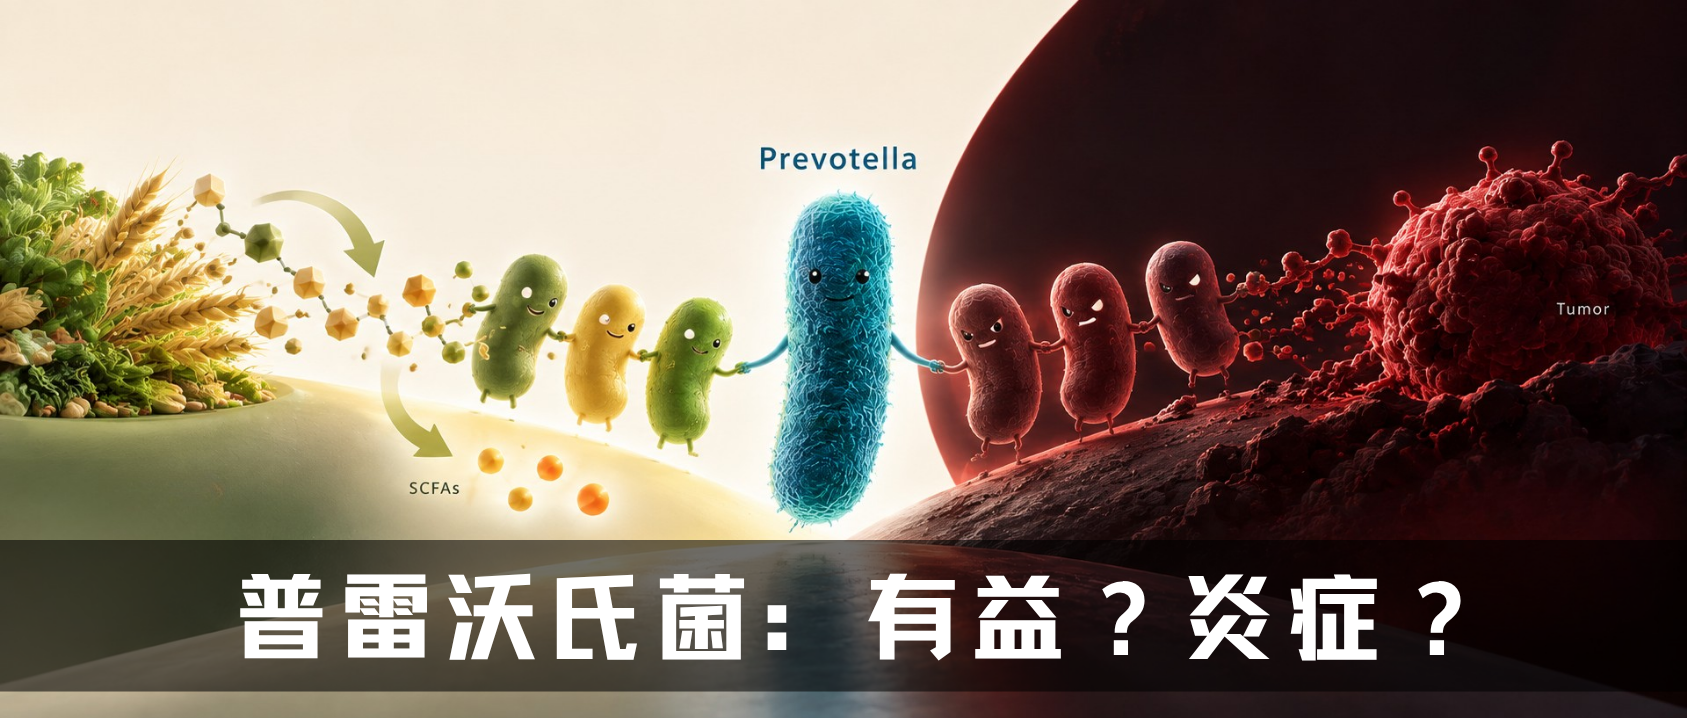
普雷沃氏菌属(Prevotella)在肠道内占据着极其特殊而复杂的地位。作为拟杆菌门的重要基石成员,普雷沃氏菌广泛定植于人群的肠道、口腔及泌尿生殖道,并因其卓越的复杂植物性碳水化合物分解能力,被确立为非西方化传统高纤维饮食人群肠道微生态的核心代表(普雷沃氏菌型)。
普雷沃氏菌在医学界呈现出令人困惑的“功能悖论”与“双刃剑”效应:一方面,它被视为发酵膳食纤维、合成保护性短链脂肪酸并维护宿主代谢与黏膜稳态的基石有益菌;另一方面,多项临床与流行病学研究将其与牙周炎、细菌性阴道病、类风湿性关节炎、代谢综合征以及胃肠道恶性肿瘤的恶化直接关联。
这种“天使与恶魔”并存的矛盾现象,使普雷沃氏菌属成为微生物学界最引人入胜、也最具转化挑战的研究对象之一。
随着宏基因组学与高通量测序的普及,人们逐渐解开了其“属水平丰度”背后的复杂性。研究者发现,普雷沃氏菌属并不是一个功能完全一致的整体,不同物种、不同菌株之间在碳水化合物利用、黏液降解、代谢产物生成、宿主黏附以及免疫调控等方面存在显著差异。换言之,“普雷沃氏菌增多”本身并不能直接等同于健康,也不能简单地被视为疾病标志。
菌株、饮食、群落、位置
决定功能方向的第一层,饮食提供了什么底物
微生物的功能都需要底物。一个拥有复杂多糖发酵能力的菌株,生活在富含阿拉伯木聚糖、果聚糖和其他可发酵纤维的肠道里,与长期生活在低纤维、高脂肪、高动物蛋白环境中的同类,代谢状态并不相同。
欧美人群的多是高脂代谢菌株,东亚人群多为谷物纤维代谢菌株。
同样一套代谢机器,输入不同,输出自然不同
高纤维饮食提供大量植物多糖(长期摄入全谷物、豆类、根茎、蔬菜等食物),容易把整个生态系统的碳流推向发酵和短链脂肪酸网络。
西方化饮食则改变可利用底物结构(高脂、高动物蛋白、低纤维饮食),也改变胆汁酸、黏液层、氧化还原状态和菌群竞争关系。
注:其他因素比如肠道转运速度会影响细菌可利用底物和停留时间;黏膜通透性决定细菌是否容易接触免疫系统;胆汁酸组成改变不同菌的竞争优势;慢性炎症提高硝酸盐、ROS 等电子受体水平;抗生素会突然清空部分竞争者;质子泵抑制剂改变胃酸屏障…这些背后都是很具体的一整套适合某些菌株生存的宿主环境。
决定功能方向的第二层,“邻居”改变它发挥作用的方式
真实肠道里没有任何细菌独自生活。
普雷沃氏菌周围可能是具核梭杆菌,也可能是普拉梭菌;可能处在慢性炎症已经形成的菌群网络中,也可能生活在一个短链脂肪酸生产和交叉喂养高度活跃的稳定社区里。
谷禾凭借专利菌群注释方法,可以基于菌群结构来精细化推断区分近似菌种,实现普雷沃氏菌的细分分型。
它所在生态网络允许什么样的代谢关系存在
如果P. intermedia与Fusobacterium nucleatum同时富集,炎症信号、上皮屏障破坏和免疫抑制可能相互叠加。反过来,普雷沃氏菌产生的乙酸、琥珀酸等中间代谢物,也可以成为其他共生菌的底物,经交叉喂养继续转化为丁酸。
这时候,即使两份肠道菌群检测报告同时都显示“Prevotella丰度占比10%”,其生态含义就不同了。
编辑
决定功能方向的第三层,它住在哪里,决定它面对什么生态位
微生物拥有自己的基因组,但它表现出来的功能,是基因组与所在组织共同“计算”的结果。
P. intermedia在牙周袋里,与它出现在健康结肠腔内,并不是同一件事。
牙龈沟有血红素、炎症渗出、氧化还原改变和持续的组织损伤;
结肠则有厚厚的黏液层、极低氧环境、不同的碳源以及高度组织化的黏膜免疫系统。
食物底物、短链脂肪酸、琥珀酸等
它的核心竞争力,是处理别人吃不动的复杂碳水
普雷沃氏菌属最值得关注的基础生物学,是它对复杂碳水化合物的处理能力。
很多普雷沃氏菌属的基因组里存在成套的多糖利用位点(Polysaccharide Utilization Loci,PULs)。
简单说,一套 PUL 不是单独的一种酶,而是一整套从“识别-抓取-切割-运输-继续降解”串在一起的系统。
外膜上的 SusD 样蛋白负责识别特定多糖,邻近糖苷水解酶把大分子切成较短片段,SusC 类转运蛋白再把寡糖送进周质空间,后续脱支酶和水解酶继续拆解,最终送入中心碳代谢和发酵网络。
因此,高纤维饮食与普雷沃氏菌属丰度之间的关系,本质上是一场生态选择——谁最擅长利用每天源源不断进入肠道的底物,谁就更容易获得增长优势。
高纤维饮食之后,看这些底物最终被怎样利用
复杂多糖经普雷沃氏菌处理之后,可以进入琥珀酸途径,生成乙酸、丙酸等代谢产物;某些与保护性表型相关的菌株,如P. melaninogenica、P. rothiae,又与丁酸相关的代谢网络联系在一起。
这些代谢物随后被宿主上皮吸收,也可能被其他细菌继续利用。
这意味着,“普雷沃氏菌属丰度上升”只是生态变化的第一层。再往下一层,需要看它是否伴随丙酸、丁酸等功能产物增加;继续往下,还可以观察宿主屏障、免疫细胞和代谢表型是否随之改变。
这也是为什么,单纯说“吃纤维可以增加某一种菌”其实略显粗糙。更需要观察的是,碳最终流向哪里。
发酵能力相似,代谢输出可以完全不同
琥珀酸在这里尤其有意思。
它既可以是细菌代谢网络中的正常中间产物,也可以在特定失衡状态下大量积累。研究表明,过多琥珀酸进入上皮细胞后,可影响 HIF-1α 稳定性以及细胞应激状态,并进一步牵动内质网应激和炎症反应。
于是,一个原本属于“碳水发酵”的代谢节点,开始与上皮损伤和慢性炎症连接起来。
这就是微生物代谢研究里一个很重要的思维方式:同一种代谢物,在不同浓度、不同组织位置以及不同宿主状态下,可能产生完全不同的生物学效应。
短链脂肪酸如此,琥珀酸也是如此。
P. copri 的争议,还提示了另一条代谢分叉:支链氨基酸
在部分菌株中,与亮氨酸、异亮氨酸等支链氨基酸合成相关的基因更丰富;在特定饮食和宿主代谢背景下,这类代谢能力被认为可能参与胰岛素抵抗相关表型。
也就是说,讨论P. copri时,还需要看“它是哪一个株系、携带哪些代谢模块”。
从复杂多糖到短链脂肪酸,从琥珀酸到支链脂肪酸,普雷沃氏菌更像一个具有高度可塑性的代谢平台。
环境决定哪一套程序获得优势。
想了解更多细节的朋友可以滑动阅览:
普雷沃氏菌属于拟杆菌门、拟杆菌纲、拟杆菌目、普雷沃氏菌科,多为革兰氏阴性、无芽孢、无鞭毛的专性厌氧杆菌。
其外膜含 LPS;部分物种具有 IX 型分泌系统(T9SS),可将黏附蛋白、蛋白水解酶及其他底物转运至细胞表面,部分分子也可通过外膜囊泡(OMVs)进入周围环境。
不同物种和菌株基因组差异较大,部分菌株还携带 β-内酰胺、大环内酯、四环素相关抗性基因及可移动遗传元件。
对于理解炎症和菌株安全性,以上这些结构特征也很重要。
<向上滑动阅览>
前面这些菌株、饮食和群落差异,最终会落到宿主身上。
在高膳食纤维环境中,部分 Prevotella参与复杂碳水发酵,产生乙酸、丙酸、琥珀酸等代谢物,并通过交叉喂养支持其他产丁酸菌,从而提高整个群落的短链脂肪酸输出。增加的丁酸等短链脂肪酸,有利于维持肠屏障和免疫稳态。
编辑
另一方向上,某些促炎相关Prevotella 菌株可以通过 LPS 和其他微生物组分激活TLR4/NF-κB、TLR2-Th17-IL-17 等炎症通路;琥珀酸等代谢变化还可能增加上皮应激和屏障损伤。持续的炎症与屏障破坏相互强化,局部环境便逐渐从短暂免疫反应转向慢性炎症。
编辑
doi.org/10.3389/fonc.2026.1855577
当这种促炎状态长期存在,它又会怎样进入肿瘤生态?
从单向作用到生态反馈
肿瘤组织自己就是一个特殊生态位。
这里有缺氧、有坏死、有异常血管、有代谢重编程,还有大量功能失调的免疫细胞。这样的环境可以反过来筛选适合在其中生存的细菌。
编辑
某些细菌促进炎症和组织损伤,组织变化又为这些细菌提供新的生态位;细菌继续改变局部代谢与免疫状态,肿瘤细胞也在不断重塑自己的周围环境。
因此,在肿瘤组织里发现普雷沃氏菌属,既可能记录肿瘤生态环境已经发生改变,也可能意味着其中某些菌株参与维持这种环境。
编辑
doi.org/10.3389/fonc.2026.1855577
它经常和具核梭杆菌一起出现
结直肠癌微生物学里,具核梭杆菌(Fusobacterium nucleatum)已经被研究多年。
它拥有FadA、Fap2等黏附和免疫调节相关分子,可以影响 E-cadherin/Wnt-β-catenin 通路、NK/T 细胞功能以及髓系抑制细胞募集。
有意思的是,一些肿瘤样本中 P. intermedia、P. nigrescens 等口源性普雷沃氏菌会和具核梭杆菌共同富集。
两者一旦进入同一个病灶,作用可能发生叠加
具核梭杆菌提供强黏附和免疫逃逸能力
普雷沃氏菌则可能增强蛋白水解、炎症和屏障破坏;
NF-κB、NLRP3、Wnt/β-catenin、STAT3 等信号网络因此彼此衔接。
编辑
doi.org/10.3389/fonc.2026.1855577
这类“微生物协同致癌”证据在体外实验、动物研究以及部分人群观察中都已出现,但人体层面的完整因果链仍需要纵向和干预研究继续验证。
这其实比寻找“某一种癌菌”更接近肿瘤真实生态:
肿瘤里值得研究的单位,很可能不是一种菌,而是一组协同工作的微生物网络。
口-肠轴与异位定植
每天都有大量口腔细菌随唾液进入消化道。大多数时候,它们难以在稳定的下消化道生态系统里建立长期优势。
但牙周炎、胃肠屏障损伤、局部炎症、药物和菌群失衡会改变这一门槛。
编辑
doi.org/10.3389/fonc.2026.1855577
P. intermedia、P. nigrescens等口源菌就可能通过吞咽进入消化道,也可能在牙龈屏障破损时进入循环。对于已经具有坏死、缺氧和黏膜结构破坏的肿瘤组织,这些菌获得了定植机会(此前没机会定植)。
微生物影响肿瘤,还深入到表观遗传层面
慢性炎症不仅改变细胞因子浓度,也会影响宿主细胞的转录和表观遗传程序。在普雷沃氏菌相关研究中:
一条路线涉及 DNA 甲基化
长期 IL-6、IL-1β 等炎症信号可影响 DNMT 等 DNA 甲基转移酶,从而改变包括 CDKN2A/p16 在内的抑癌相关基因表达。
另一条更前沿的路线涉及 m6A RNA 修饰
已有研究把普雷沃氏菌相关炎症环境与METTL3 上调联系起来;METTL3 介导的 m6A 修饰可以改变 c-Myc、STAT3 等转录本稳定性,也与 PD-L1 mRNA 稳定性及免疫逃逸相关。
它出现在癌变过程的哪一步?
结直肠癌研究里,P. intermedia 是目前相对受关注的物种之一。
2022 年的一项研究在结直肠腺癌组织中发现P. intermedia富集,并观察到它与具核梭杆菌共同存在时,对癌细胞迁移和侵袭表现出叠加效应。随后还有研究在控制肠道转运时间、粪便钙卫蛋白和 BMI 等混杂因素后,继续观察到P. intermedia与结直肠癌的相关性。
这类证据开始连接组织定位、菌群协同和功能实验。可人体癌变往往跨越十几年甚至几十年。研究者最终需要解决的是时间顺序:菌群改变是在腺瘤之前就出现,还是在肿瘤改变局部环境之后才显著富集?它参与的是癌变启动、进展、免疫逃逸,还是治疗耐药?
这也是为什么纵向队列尤其关键。
胃癌、口腔癌、食管癌,呈现出不同的组合
胃癌中,肿瘤来源的P. intermedia 与疾病进展之间已有研究联系,其中包括 PLIN3 等宿主通路。
口腔鳞状细胞癌的证据更贴近其原生生态位。患者-对照研究发现P. intermedia检出差异,实验研究则观察到其可促进肿瘤细胞增殖、侵袭和炎症因子释放;较新的研究还把肿瘤内P. intermedia与 ISG15、M2 型巨噬细胞极化和免疫抑制微环境连接起来。
食管鳞癌研究中,P. nigrescens 感染与 Ki67、p-STAT3 等增殖信号升高有关。
Prevotella 并不只生活在肠道。口腔、阴道等黏膜部位都可以发现这个菌属,而不同部位提供的营养、氧化还原状态、邻近菌群和免疫环境并不相同。
为什么某些普雷沃氏菌在牙周袋这样的环境里容易扩增?
口腔是普雷沃氏菌属最重要的生态位之一。特别是P. intermedia、P. nigrescens 等产黑色素厌氧菌,与牙周疾病长期联系在一起。
牙龈炎症时,组织出血增加,血红素和铁资源大量进入牙周袋;与此同时,局部氧化还原环境下降,更适合厌氧菌生长。
吸烟为什么也会和口腔 Prevotella 联系起来?
吸烟并不是单纯把某种细菌吸进嘴里。它改变的是局部氧化还原状态、免疫反应、唾液环境和黏膜状态,因此可以重新排列口腔微生物竞争关系。
吸烟者口腔中P. melaninogenica、P. pallens 等物种可发生富集;如果同时存在口腔卫生差、吞咽功能异常等情况,口腔厌氧菌还可能进入下呼吸道。
这里再次说明:生活方式和微生物之间的关系,往往通过改变生态位实现。
P. intermedia的血红素利用和乳铁蛋白相关铁获取能力,这些特征让它在炎症牙周袋中的竞争力明显提高。
牙周炎改变环境 → 环境选择Prevotella → Prevotella 加重局部炎症和组织破坏 → 新的营养和生态位继续释放
编辑
阴道:群落结构决定它能不能扩张
阴道微生态提供了另一个很典型的例子。
健康状态下,乳杆菌通常占据优势,并通过维持较低 pH等方式限制其他微生物扩张。
当乳杆菌减少、乳酸下降、pH 上升,这种稳定结构被打破后,Prevotella bivia等厌氧菌获得新的生态空间。
随后又会出现微生物之间的代谢互利。例如 P. bivia 与 Gardnerella vaginalis可以通过代谢物交换促进彼此生长,帮助致病性生物膜形成。
注:这和肠道里的 普雷沃氏菌和具核梭杆菌协同并不是同一个机制,却在生态学上讲的是同一件事:环境先改变竞争规则,随后微生物之间的合作进一步稳定新的失衡状态。
从黏膜到关节:影响还可以延伸到远端
环境依赖性还有一个更复杂的层面:微生物生活在黏膜,但它引起的免疫变化未必停留在原来的位置。
类风湿关节炎是其中较受关注的例子。
部分研究发现,P. copri与类风湿关节炎人群中的菌群变化存在关联,而 Prevotella相关的 TLR、Th17 和 IL-17 等免疫通路,也被用于解释黏膜微生物变化与远端炎症之间可能存在的连接。
在特定类风湿关节炎模型和宿主背景下,高纤维饮食与 P. copri甚至可能协同加重炎症。
注:营养学进入微生态时代以后,一个越来越清楚的方向,就是从“这种食物平均有什么作用”,走向:这种底物,在这个人的这套菌群里,会被谁利用,最后生成什么?
神经、过敏、IBS 、多发性硬化研究
部分儿童队列中,自闭症谱系障碍与较低 Prevotella丰度出现相关;
一些婴幼儿研究观察到P. copri定植与食物过敏风险存在关系;
多发性硬化动物研究中,Prevotella histicola 显示出增加 Treg、降低 Th17 相关炎症的潜力。
腹泻型肠易激综合征和部分慢性黏膜炎症研究又发现某些Prevotella富集。
这也说明,这个菌属的生物学意义高度依赖宿主免疫状态、组织生态位和具体菌株。
微生态研究早期,人们很自然地希望找到,哪些菌有益,哪些菌有害;少了就补,多了就杀。这很容易理解,也很方便传播。
普雷沃氏菌,也许正使我们放弃“好菌坏菌”的那套思路。
它可以出现在高纤维、短链脂肪酸丰富的肠道生态中;也可以参与 Th17 型慢性炎症。
它可以通过代谢物帮助维护屏障和 Treg 稳态;某些菌株又可以借助 LPS、T9SS、OMVs 和其他机制推动组织损伤。
它可以是人体长期共生生态系统的一部分,也可以在牙周炎、肠道失衡或肿瘤形成的新生态位中获得完全不同的功能位置。
谷禾凭借积累的海量肠道菌群样本,深度提取菌群构成结构中隐含的信息,从不同的健康轴洞察普雷沃氏菌的健康影响。基于健康轴和菌群结构,我们将全面量化普雷沃氏菌的个性化干预策略,让菌群调整更精准。
相关阅读:
肠道重要基石菌属——普雷沃氏菌属 Prevotella
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
主要参考文献
向上滑动阅览
Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75:10–45.
Dammeijer F, et al. The PD-1/PD-L1-checkpoint restrains T cell immunity in tumor-draining lymph nodes. Cancer Cell. 2020;38:685–700.e8.
Lu Z, Tang D. The dual roles of Prevotella in gastrointestinal tumorigenesis: from molecular mechanisms to therapeutic prospects. Frontiers in Oncology. 2026;16:1855577.
Wong CC, Yu J. Gut microbiota in colorectal cancer development and therapy. Nat Rev Clin Oncol. 2023;20:429–52.
Tett A, et al. Prevotella diversity, niches and interactions with the human host. Nat Rev Microbiol. 2021;19:585–99.
Fehlner-Peach H, et al. Distinct polysaccharide utilization profiles of human intestinal Prevotella copri isolates. Cell Host Microbe. 2019;26:680–690.e5.
Gálvez EJC, et al. Distinct Polysaccharide Utilization Determines Interspecies Competition between Intestinal Prevotella spp. Cell Host Microbe. 2020;28:838–852.e6.
Larsen JM. The immune response to Prevotella bacteria in chronic inflammatory disease. Immunology. 2017;151:363–74.
Hao QY, et al. Prevotella copri promotes vascular calcification via lipopolysaccharide through activation of NF-kB signaling pathway. Gut Microbes. 2024;16:2351532.
Tannahill GM, et al. Succinate is an inflammatory signal that induces IL-1b through HIF-1a. Nature. 2013;496:238–42.
Urra H, et al. Endoplasmic reticulum stress and the hallmarks of cancer. Trends Cancer. 2016;2:252–62.
Gur C, et al. Binding of the Fap2 protein of Fusobacterium nucleatum to human inhibitory receptor TIGIT protects tumors from immune cell attack. Immunity. 2015;42:344–55.
Lo CH, et al. Enrichment of Prevotella intermedia in human colorectal cancer and its additive effects with Fusobacterium nucleatum on the Malignant transformation of colorectal adenomas. J Biomed Sci. 2022;29:88.
Cogrossi LL, et al. Microbiome modulation uncouples efficacy and toxicity induced by immune checkpoint blockade in mouse multiple myeloma. Nat Commun. 2025;16:65312.
Furusawa Y, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature. 2013;504:446–50.
谷禾健康
腐烂别样杆菌(Alistipes putredinis)属于拟杆菌门、另枝菌属的重要物种,是肠道中较具代表性的蛋白质发酵型厌氧菌。与部分以复杂碳水化合物发酵为主的结肠厌氧菌相比,其糖类利用能力相对较弱,因此其丰度可能受肠腔内蛋白质和氨基酸供给、可发酵碳水化合物的可利用性,以及其他菌群对糖类底物的优先消耗影响。当高蛋白供给、氨基酸底物丰富且膳食纤维不足时,该菌会获得相对有利的生长条件。
多项小鼠研究及小规模人体队列研究提示,A.putredinis在肠道屏障完整的情况下,可以促进免疫耐受并抑制过度炎症;而在屏障破坏和菌群失衡背景下,其定植量增加,伴随的琥珀酸相关代谢信号促进 Th17 型炎症反应。意味着当我们持续高蛋白,缺乏膳食纤维时,如果菌群失调,肠屏障受损时,该菌会转向机会扩张并促炎。
近年来的队列研究和多组学分析显示,A.putredinis丰度升高对身体活动后的体重反应,能够减轻高脂饮食中的体重增加、对代谢综合征风险、脂肪性肝病及溃疡性结肠炎等也有潜在保护作用;但同时另外的研究也指出该菌的丰度升高与抑郁、功能性便秘、焦虑和慢性疲劳等症状呈现正相关。
这种看似矛盾的结果进一步说明,A. putredinis 不能被简单归类为“有益菌”或“有害菌”,当肠道菌群检测出该菌超标或丰度过高过低时,要受检者的症状,炎症和屏障指标,以及近期饮食干预等状况综合解读。
腐烂别样杆菌(Alistipes putredinis)属于拟杆菌目下理研菌科(Rikenellaceae)的另枝菌属(Alistipes)。
该菌最早于1937年被描述为Bacteroides putredinis(”腐臭拟杆菌”,种名 putredinis 源自拉丁语”腐臭”,与其腐败代谢特征相关)。
2003年基于16S rRNA基因序列与生化特征,将其重新分类为新属Alistipes的模式种。
1. 细胞形态与培养特征
✔形态:革兰氏阴性短杆菌,两端钝圆,通常单个或成对排列;无芽孢、无鞭毛且不运动。大小约0.3–0.5 × 0.9–3.0 μm。
✔菌落特征:在哥伦比亚血琼脂上厌氧培养 96 小时后,形成灰色、湿润、细小且不溶血的菌落,大小约为针尖至 0.5 mm,表面光滑,颜色由半透明至灰白色。
✔色素:不产色素,可与产棕褐色色素的A.finegoldii、A.onderdonkii和A.shahii区分。
✔生长特性:
严格厌氧,生长缓慢,在液体培养基中生长较弱,部分条件下可产气,耐氧性较差,暴露于氧气后活菌数随时间延长而下降,120 分钟后仅少量存活;胆汁耐受,但不耐受 20% 胆汁,这一点不同于该属多数耐胆汁种。
2. 基因组特征
对模式菌株 CCUG 45780ᵀ 的全基因组测序显示 :
•染色体呈环状,全长 2,599,205 bp(约2.6Mb),GC 含量为 53.63%。
•共注释 2479 个基因,包括 2423 个蛋白质编码序列、6 个 rRNA、49 个 tRNA 和 1 个 ncRNA。
•携带13 个 Set A 核心毒力基因和28 个 Set B 毒力相关基因,主要参与黏附、抗吞噬、镁离子摄取、表面结构形成及环境适应。
•检出11 个耐药基因,主要与大环内酯类、四环素类和氨基糖苷类耐药有关,以外排泵为主要机制。
•功能注释表明,其基因主要富集于碳水化合物、氨基酸、能量以及辅因子和维生素代谢通路,显示出较强的代谢多样性。
3. 生化与代谢能力
✔关键生化表型:
编辑
✔核心代谢策略:蛋白质/氨基酸发酵
A. putredinis的显著生态学特点是采用”弱糖酵解,蛋白发酵“策略——主要发酵蛋白质和氨基酸而非碳水化合物,以此避开肠道中与糖发酵菌的资源竞争。
事实上,Alistipes 是肠道共生菌中腐败代谢通路最丰富的菌属之一,可参与组氨酸降解/THF生成、吲哚生成和苯酚生成,产生氨、H₂S、甲酚、吲哚、苯酚等腐败产物(其中部分与结直肠癌风险相关)。
✔主要代谢产物:
琥珀酸(succinate)——最主要的体外终产物,是丙酸生成的中间体,具有促炎潜能;
丙酸(经琥珀酸途径)、乙酸——供能、抗炎、调节血压。
吲哚-3-丙酸(IPA)——强抗氧化物,保护血管内皮与神经系统,通过靶向STAT3对抗饮食诱导的肥胖来增强瘦素敏感性;
吲哚乙酸(IAA)等——介导色氨酸代谢与免疫调控;
由于吲哚阳性,其丰度升高时会与肠嗜铬细胞竞争色氨酸,间接降低 5-羟色胺(血清素)合成(与抑郁、功能性便秘相关)。
靶向代谢组学显示培养上清中 9 种能量代谢物显著升高(磷酸烯醇式丙酮酸、丙酮酸、D-葡萄糖-6-磷酸等),其中仅琥珀酸具明确促炎作用 。
4. 生长环境与人群分布
✔定植部位:
主要定植于回肠末端和结肠,是耐胆汁环境下仍可定植的核心厌氧菌之一;
也可从粪便、阑尾组织、腹部及直肠脓肿、血流、尿液、腹水中分离(条件致病时);
动物来源:羊腐蹄病、农场土壤、家禽肠道(鸡盲肠中为丙酸产生菌)。
✔人群分布规律:
健康人群:普遍存在,是肠道共生菌之一;宏基因组调查显示其为 Alistipes 属中丰度最高的物种。
年龄:老年人(≥65 岁)中 Alistipes 属显著富集;值得注意的是,在长寿女性(≥90 岁)中A.putredinis、A.finegoldii、A.shahii 比年轻老年组(60–90 岁)富集约 3.2 倍,被视为健康衰老的潜在共生标志物 。该属还可垂直传播 3–4 代。
✔丰度降低相关的疾病状态:
炎症性肠病(IBD)、肝硬化、慢性疲劳综合征、焦虑、肥胖、儿童食物过敏等。
5. 耐药性与药敏谱
✔敏感:克林霉素、头孢西丁、氯霉素、红霉素、甲硝唑 ;
✔中度耐药:四环素、强力霉素;
✔临床菌株:对 β-内酰胺/β-内酰胺酶抑制剂和甲硝唑 MIC 低,对青霉素、头孢曲松、米诺环素 MIC 高 ;
基因组预测的 11 个耐药基因主要针对大环内酯类、四环素类、氨基糖苷类,以外排泵机制为主 。
临床意义:厌氧菌感染治疗中甲硝唑、β-内酰胺类仍是可靠选择;对四环素类的固有/获得性中度耐药提示该类药不适用于相关感染。
6. 与其他菌群的互作
•腐烂别样杆菌(Alistipes putredinis)与 Bacteroides fragilis、Faecalibacterium prausnitzii、Akkermansia muciniphila等短链脂肪酸产生菌协同互补;
•与链球菌属存在潜在拮抗关系(房颤患者链球菌暴增伴随 Alistipes 骤降);
•DSS 结肠炎模型中,灌胃该菌使拟杆菌门增多、放线菌门和乳杆菌属减少,并增加 肠球菌、肠杆菌、埃希菌 等机会致病菌丰度——即破坏菌群稳态;
•高脂饮食下,属内近缘种(A. finegoldii)的外膜囊泡(OMVs)含磺酰脂类(sulfonolipids)加重炎症,提示饮食-菌群互作决定其表型方向 。
腐烂别样杆菌(Alistipes putredinis)在人体健康与疾病中的作用并非单一。在阅读了众多文献后,较为一致的观点是:在代谢健康与部分正常黏膜微环境中,它相对常见;但在炎症或肿瘤相关微环境中,特定菌株或在属水平的升高可能转而表现出促炎、促病效应。在人类与动物研究中,这种“双相性”已分别与肝病、炎症性肠病、结直肠癌、抑郁以及肺癌免疫治疗反应相关。
A. putredinis 对宿主的作用具有双重性
✔抗炎通路:从溃疡性结肠炎(UC)患者优质 FMT 供体分离的 A. putredinis 菌株可经 TLR2 诱导抗炎性 IL-10 产生,抑制肠道炎症 。
✔促炎通路:Alistipes putredinis分泌的琥珀酸可作为“代谢激素”作用于宿主琥珀酸受体 SUCNR1(GPR91),稳定 HIF-1α,进而上调 IL-1β、增强 NLRP3 炎症小体活化(提高 ASC、caspase-1 及 IL-1β/IL-18 表达),促进树突细胞抗原提呈并驱动 Th17 分化,同时抑制 Treg 功能。
其基因组携带与黏附和抗吞噬相关的毒力基因(如 katA、htpB、clpP、cpsA、algI 等)。
✔双重性模型:在健康小鼠中口服该菌(10⁹ CFU/天)不引起任何病理改变(体重、血象、脏器病理、炎症因子均正常);只有当 DSS 破坏肠道屏障后(第二次打击),该菌才借机增强定植并放大炎症。
小编的话
A. putredinis的生物学效应具有明显的菌株特异性和宿主环境依赖性:
在屏障完整的肠道中,部分菌株可能通过 TLR2–IL-10 轴促进免疫耐受;而在 实验中通过DSS所致屏障破坏和菌群失衡背景下,其定植增强及琥珀酸相关代谢信号可能激活 SUCNR1–HIF-1α 和 NLRP3 炎症通路,从而放大 Th17 型肠道炎症。
意味着当我们屏障受损或菌群失调时,该菌会机会扩张促炎,因此,我们偏向该菌可能是条件共生菌,有益或有害依赖宿主环境。
1. 调节活动控制体重的效果
编辑
影响因子:11.607
来自哈佛大学的一项研究发现肠道中的Alistipes putredinis可以调节体力活动/身体活动(PA)和体重之间的关联。
✔高A. putredinis丰度人群体重增幅更小
研究人员对一项卫生专业人员队列进行了长期随访,并从中筛选一个子队列开展为期一年的深入研究:采集粪便与血液样本,检测肠道微生物及血液指标,同时记录详细的身体活动数据。分析显示,体重在长期趋势上会随年龄增长而增加;但在具有较高 A. putredinis 丰度的人群中,身体活动带来的体重增幅平均减少 2.26 kg,而在 A. putredinis 丰度较低的人群中,体重增幅平均仅减少 1.01 kg。
编辑
doi: 10.1186/s40168-023-01542-w.
✔A. putredinis调节体重反应,可能有助于代谢健康
通过功能分析推测:当A. putredinis存在时,它对 PA(身体活动)—体重反应的调节可能与多种微生物代谢途径有关,例如糖异生、脂肪酸 β-氧化、棕榈油酸生物合成和叶酸转化等。该结果提示:肠道微生物特征可能是影响体重变化及其对PA 代谢反应的重要组成部分。
研究者提出两种主要假设:其一,携带A.putredinis 可能通过改变肠道代谢,提高 PA 对抑制体重增加的有益作用;其二,较低 PA 再叠加其他外源性因素,可能增加获得 A. putredinis并进一步导致体重增加的机会。
一旦得到确认,这一发现可能带来两方面意义:第一,它支持肠道微生物调节有潜力增强 PA 在体重管理中的效果;针对个体微生物特征定制的策略,或可作为减轻肥胖相关健康风险的更可持续方案。第二,它也开启新的研究方向:寻找可提升A.putredinis 丰度、从而带来PA 相关代谢获益的方法。
尽管未观察到 PA 与 A. putredinis的直接关联,但已有证据显示,在糖尿病前期人群中,PA 干预可增加该菌;同时,十字花科蔬菜摄入也被报道与人体该类菌丰度增加有关。
2. 更低的代谢综合征风险
编辑
影响因子:6.633
在一项对1342 名受试者的横断面研究中发现,Alistipes putredinis更高丰度与代谢综合征更低风险、潜在更好的血管健康信号相关。
✔Alistipes putredinis与代谢综合征呈负相关
在对1342名中国受试者开展的大规模研究中,研究者借助宏基因组测序系统分析了健康生活方式、肠道微生物群与代谢综合征(MetS)的关系。
结果显示,Alistipes putredinis、Odoribacter splanchnicus和 Roseburia hominis 的丰度与健康生活方式呈显著正相关;同时与MetS 风险呈负相关。
Alistipes putredinis丰度更高时,微生物进行同型乳酸发酵能力的增强,血浆中的肉桂基甘氨酸和甜菜碱水平升高,这些被发现是与代谢综合征和血管健康相关的潜在微生物效应因子。
✔可能通过微生物代谢产物影响血管健康
该研究通过多组学进一步鉴定出与健康生活方式及 血管指标相关的关键微生物代谢通路和血浆代谢物。其中,Cinnamoylglycine(N-肉桂酰甘氨酸)和甜菜碱与由肠道微生物增强的同型乳酸发酵相关;同时,它们与更好的血管健康结局(如动脉僵硬、早期动脉病变、PAD)表现相关;并且这些代谢物与相关厌氧发酵产能菌(包括A.putredinis)丰度有关。
与HLS相关的微生物功能与代谢综合征存在密切关联
编辑
doi: 10.1128/msystems.01433-25
3. 脂肪性肝病中丰度下降
编辑
影响因子:4.546
✔代谢相关脂肪性肝病患者A. putredinis减少,补充后可改善症状
研究发现,在代谢相关脂肪性肝病中,A.putredinis 丰度持续下降,且与肝纤维化进展呈负相关,纤维化越重丰度越低。
在高脂饮食诱导的代谢功能障碍相关脂肪性肝病(MASLD)小鼠模型中,补充Alistipes putredinis 菌株 Ap77 后,动物体重增加受抑、肝脏甘油三酯水平下降,脂肪沉积减少,并伴随肝组织学及肝功能相关指标的改善。
✔A.putredinis可能有助于抑制炎症信号通路
补充A. putredinis 菌株 Ap77后,观察到:炎症相关细胞因子(如 IL-1β、IL-6、TNF-α)显著下降,并且健康相关细菌种类增加,提示肠道微生物群结构被重塑。研究人员认为,A. putredinis Ap77 可能通过改善肠道生态组成并抑制炎症信号通路来缓解代谢功能障碍相关脂肪性肝。
编辑
doi: 10.3390/nu17122013.
4. 溃疡性结肠炎中减少
编辑
影响因子:4.261
在溃疡性结肠炎患者中,A. putredinis的比例有所下降。而在治疗后呈现定植/丰度恢复的趋势,并通过诱导 IL-10(与 TLR2 信号通路相关)发挥抗炎作用,进而缓解结肠炎表型。
✔A. putredinis抑制炎症,促进 IL-10 产生(抗炎通路相关)
体外实验显示,A. putredinis菌株具有较强的诱导抗炎因子 IL-10活性,并且 IL-10 产生与 TLR2 信号通路有关(用 TLR2/TLR4 抑制/阻断后 IL-10 诱导能力下降)。
体内结肠炎模型中,口服给予 AP 后,结肠炎指标改善,表现为体重损失减轻、结肠长度等炎症相关表现更接近正常,支持其抗炎效应。
✔但也存在矛盾的证据:A. putredinis CCUG 45780ᵀ加重结肠炎
编辑
影响因子:2.989
A. putredinis CCUG 45780ᵀ 灌胃显著加重 DSS 结肠炎——体重下降、DAI 升高、结肠缩短、脾肿大、黏膜损伤与黏蛋白减少,TNF-α、IL-1β、IL-6、NLRP3 表达上调;机制为琥珀酸–SUCNR1 信号轴(结肠内容物琥珀酸升高、SUCNR1 表达上调)联合菌群失调 。
可能的合理解释:①种间功能差异巨大;② 菌株特异性;③ 丰度与疾病阶段依赖性(低丰度早期能促进 Treg,过度增殖时经 IL-6/STAT3 促炎);④ 饮食背景(高脂转向促炎)。
5. 可能促进乳腺癌转移
编辑
慢性应激可改变肠道菌群,促使Alistipes putredinis丰度升高,并伴随吲哚-3-乙酸(IAA)产生增加。
在患者/人群层面,研究发现乳腺癌患者中A.putredinis及 IAA 水平均可升高,且在合并严重抑郁人群中更为明显。
✔A.putredinis增多会提高IAA水平进而增加氧化应激
研究认为,应激诱导的A. putredinis增多会提高 IAA 水平,进而通过 AhR(芳香烃受体) 通路介导的氧化应激,促进癌症发生肺转移。
干预效应:使用黄芩苷(baicalin)可抑制该过程,包括降低A. putredinis丰度与 IAA 生成,从而缓解 AhR 相关氧化应激与转移表型,并增强肺部 CD8+ T细胞活性,提示其可能同时改善免疫效应。
✔可能成为癌症免疫治疗应答的预测标志
在非小细胞肺癌(NSCLC)患者中发现对 nivolumab(抗 PD-1)应答良好者 A. putredinis丰度显著升高。
6. 其他疾病关联
①食物过敏:过敏儿童中A.putredinis和A.finegoldii显著减少,SCFA 依赖的屏障完整性与免疫调节是其保护机制 。
②功能性便秘:患者肠道Alistipes显著高于健康对照,假设其过度将色氨酸转化为吲哚类,竞争性抑制肠嗜铬细胞 5-HT 合成,延长结肠传输时间。
③抑郁:中国重度抑郁症患者粪便中Alistipes 增多,机制假说:吲哚阳性菌竞争色氨酸 → 5-HT 合成减少 ;但也有研究报道抑郁中本菌减少,提示结论不一致。
④慢性疲劳综合征(ME/CFS):挪威患者中 Alistipes增加近 4 倍 。
⑤焦虑与应激:BALB/c 小鼠应激模型中Alistipes显著增加并伴行为改变 。
⑥自闭症谱系:意大利 ASD 儿童中Alistipes减少(保护性),但 PDD-NOS 亚型中最高(可能与丙酸过量产生及其神经生物学效应相关)。
7. 机会性感染风险
A. putredinis可在特定条件下从胃肠道异位至血流,尤其在老年合并消化道肿瘤或梗阻的患者中。日本一项回顾性分析报告13例 Alistipes 菌血症,其中3例为A. putredinis感染,2例合并实体瘤的老年患者死于脓毒性休克。
总体而言,腐烂别样杆菌(Alistipes putredinis)应被视为一种具有情境依赖性的肠道共生菌,而非固定意义上的益生菌或病原菌。其核心特征在于严格厌氧定植、偏好蛋白质和氨基酸发酵,以及可产生琥珀酸、短链脂肪酸和吲哚类代谢物等具有宿主信号作用的分子。
在健康肠道或代谢相对稳定的背景下,较高丰度或某些功能性菌株与较低的代谢综合征风险、较好的身体活动—体重反应、脂肪性肝病改善及抗炎性 IL-10 反应相关;但这些关联尚不能直接等同于因果效应。
相反,在高脂饮食、肠屏障受损、菌群失衡、慢性应激或肿瘤相关微环境中,特定菌株及其琥珀酸或 IAA 等代谢产物可能通过 SUCNR1、AhR 等信号轴促进炎症、氧化应激或不良结局。并且在临床上,A. putredinis还偶可发生异位并参与感染。
因此,临床或完成肠道菌群检测后,不能仅凭单一菌种判断其好坏,需结合整体肠道微生态、功能基因、代谢物谱及宿主生活方式综合评估。例如在肠道健康的人体中 Alistipes putredinis可能有益,但若纤维摄入不足、蛋白摄入过量,或是肠道屏障受损,它也可能转为有害。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Zhang Y, Xie J, Yan X, Zhao W, Xu H, Sun L, Wang H, Zhao L. The role of the Alistipes genus in intestinal inflammation, cancer, and aging: a narrative review. Front Microbiol. 2026 May 21;17:1822008.
Wang K, Mehta RS, Ma W, Nguyen LH, Wang DD, Ghazi AR, Yan Y, Al-Shaar L, Wang Y, Hang D, Fu BC, Ogino S, Rimm EB, Hu FB, Carmody RN, Garrett WS, Sun Q, Chan AT, Huttenhower C, Song M. The gut microbiome modifies the associations of short- and long-term physical activity with body weight changes. Microbiome. 2023 May 30;11(1):121.
Zhang Z, Ye B, He J, Xiang L, Li S, Zhao J, Chen W, Zhang Q, Zhao W, Yang J, Li Y, Ju J, Liu Y, Xia M. Microbial metabolites associated with healthy lifestyles in relation to metabolic syndrome and vascular health: a cross-sectional study. mSystems. 2026 Feb 17;11(2):e0143325.
Zhang S, Wang R, Zhao R, Lu Y, Xu M, Lin X, Lan R, Zhang S, Tang H, Fan Q, Yang J, Liu L, Xu J. Alistipes putredinis Ameliorates Metabolic Dysfunction-Associated Steatotic Liver Disease in Rats via Gut Microbiota Remodeling and Inflammatory Suppression. Nutrients. 2025 Jun 16;17(12):2013.
https://doi.org/10.1002/9781118960608.gbm00251Digital Object Identifier (DOI)
Ishikawa D, Zhang X, Nomura K, Shibuya T, Hojo M, Yamashita M, Koizumi S, Yamazaki F, Iwamoto S, Saito M, Kunigo K, Nakano R, Honma N, Urakawa I, Nagahara A. Anti-inflammatory Effects of Bacteroidota Strains Derived From Outstanding Donors of Fecal Microbiota Transplantation for the Treatment of Ulcerative Colitis. Inflamm Bowel Dis. 2024 Nov 4;30(11):2136-2145.
Niu M, He QY, Chen YX, Liu SM, Pan YQ, Zhu XR, Miao YL, Du Y. Alistipes putredinis CCUG 45780T exacerbates DSS-induced colitis in mice via modulation of gut microbiota and succinate metabolism. BMC Microbiol. 2025 Nov 27;25(1):786.
谷禾健康
什么是慢性疲劳?
疲劳是身体向我们发出的信号,表明我们需要休息和恢复体力。这种疲劳通常发生在剧烈运动后或睡眠不足时。通常情况下,我们可以通过增加睡眠时间、让身体在运动后得到恢复、保持健康的饮食习惯以及减少压力来缓解疲劳。
但是,如果你即使睡了一晚上,并且戒掉了糖分摄入后仍然感到疲惫不堪,那么疲劳就可能变成了慢性问题。
患有慢性疲劳的人不仅身体疲惫无力,还会缺乏完成日常任务的动力,无法集中注意力,甚至可能会感到轻微的抑郁情绪。
贫血
贫血的主要症状是疲劳。贫血可能由多种原因引起,但常见的三种营养因素包括铁、维生素B12和叶酸(维生素B9)的缺乏。
疲劳最常见的原因之一就是缺铁。实际上,缺铁是全球范围内最常见的营养缺乏现象。人体中的大部分铁都存在于血红蛋白中,血红蛋白有助于将氧气输送到细胞,而细胞则利用氧气来产生能量。
铁含量低可能由以下原因引起:
血液检测:由于血液中的铁含量每天都会有所波动,并且在摄入富含铁的食物后会有所增加,因此建议进行铁蛋白检测。如果长期的调理铁,还要做肠道菌群的评估。
维生素B12缺乏
像铁一样,维生素B12也是制造红细胞所必需的成分,因此它是产生能量的关键营养素。此外,维生素B12在制造 DNA方面也起着重要作用,同时它对于大脑和神经系统的正常运作也是不可或缺的。
维生素B12缺乏可能需要数年时间才会显现出来,因为肝脏中有储存大量的维生素B12的能力。
容易出现维生素 B12 缺乏的人群包括:
叶酸(维生素 B9)缺乏
叶酸是另一种对生成红细胞至关重要的维生素。它对于过程也是必需的。
叶酸缺乏通常发生在那些摄入水果和蔬菜不足的人身上。酗酒者以及哺乳期母亲也更容易出现叶酸缺乏的问题。
甲状腺功能低下(甲状腺功能减退)
患有甲状腺功能减退症的人会感到疲劳、难以减肥、出现脱发现象,并且对寒冷非常敏感。
大约 90%的甲状腺功能减退病例是由一种名为桥本氏甲状腺炎的自体疾病引起的。
编辑
如果有甲状腺功能减退的症状,医生通常会先检测患者的促甲状腺激素水平。促甲状腺激素是一种促使甲状腺分泌甲状腺激素的激素。还可能检测游离 T3 和游离 T4的水平。
如果需要的话,还会检查甲状腺抗体水平:甲状腺过氧化物酶抗体(TPOAbs)和甲状腺球蛋白抗体(TgAbs)。超过90%的桥本病患者检测出 TPOAbs 阳性,而大约大于70%的患者检测出 TgAbs 阳性。
维生素D缺乏
除了缺铁之外,最常见的营养缺乏之一是维生素 D 缺乏。全球有近十亿人受到这种状况的影响。由于阳光照射与皮肤癌和皮肤损伤之间的关联,人们大大减少了在阳光下停留的时间。不过,因为阳光照射能够满足人体 50-90%的维生素 D 需求,所以还是有必要进行适量的阳光照射。
只有少数食物天然含有维生素 D,而强化食品则不太可能满足全额的日常需求。
许多研究也表明,维生素 D 缺乏与疲劳症状有关。补充维生素 D 能够改善健康人群以及各种疾病患者的疲劳症状。
肠道微生物群
肠道微生物群在疲劳和慢性疲劳综合征中扮演着重要角色,肠道微生物群可以帮助产生重要的神经递质,维持肠道屏障完整性,防止炎症物质进入血液。在慢性疲劳综合征患者中,研究发现产丁酸盐菌明显减少,这可能与症状严重程度相关。
对慢性疲劳综合征患者进行的干预主要集中在使用双歧杆菌和乳酸菌菌株上,这些菌株在减少炎症和氧化应激方面始终表现出良好的效果,并且伴随着疲劳感的降低。例如,在8周内使用干酪乳杆菌菌株Shirota的益生菌治疗可显著降低慢性疲劳综合征(ME/CFS)患者的炎症标志物。
编辑
doi.org/10.3390/nu16111545
肝功能严重受损
肝脏负责帮助消化、解毒药物和化学物质、合成蛋白质,以及储存铁、维生素 A 和 B12 等营养物质。肝脏在维持人体能量水平方面起着至关重要的作用,而疲劳则是慢性肝病患者常见的症状之一。
睾酮水平低
睾酮是一种对维持高能量水平至关重要的激素,不仅对男性如此,对女性也是如此。睾酮水平较低的人最常见的抱怨就是缺乏能量和动力。
不幸的是,男性和女性的睾酮水平在 20 多岁达到高峰后,每年会下降 1-2%。
减轻压力
压力和疲劳之间存在着密切的关联,它们经常同时出现,并且会相互影响。生活中的压力不仅可能导致创伤后应激障碍,还可能引发慢性疲劳综合症。
多项研究指出,认知行为疗法在压力管理方面能够有效减轻慢性疲劳综合症、纤维肌痛症和多发性硬化症引起的疲劳感。同样,将认知行为疗法与正念冥想相结合使用,也有助于缓解纤维肌痛症和癌症患者出现的疲劳症状。
编辑
研究表明,通过呼吸练习和肌肉放松练习来进行放松疗法,对于缓解慢性疲劳综合症、多发性硬化症、癌症、心力衰竭以及干细胞移植等疾病的疲劳症状有一定的帮助。不过,在那些同时比较了这两种疗法的研究中,认知行为疗法表现得更为有效。
提高睡眠质量
睡眠对保持健康至关重要。如果无法获得足够且高质量的睡眠,就会引发疲劳以及其他多种健康问题。从事夜班工作或夜间工作的人(如医疗专业人员)更容易出现睡眠障碍和疲劳现象。
在患有慢性疲劳综合症、癌症、多发性硬化症、炎症性肠病以及过敏性鼻炎等疾病的人群中,睡眠障碍非常常见。而这些症状往往会进一步加重患者的疲劳感。
编辑
一些临床研究表明,针对睡眠障碍的治疗可能有助于缓解由某些疾病引起的疲劳症状,例如癌症和多发性硬化症。此外,认知行为疗法也被认为能够改善慢性疲劳综合征患者的睡眠质量。
吃出好睡眠:基于肠道菌群的营养干预落地方案
锻炼
久坐不动的生活方式是导致持续疲劳的常见原因。多项研究指出,增加锻炼量有助于减轻健康人的疲劳感。然而,在一项针对中老年人进行的调查中,人们最常给出的不锻炼的理由却是“太累了”。
患有慢性疲劳综合症的人特别难以满足身体活动的要求。根据一项荟萃分析,对于这类患者来说,定期进行体育锻炼有助于减轻疲劳感,其效果甚至优于健康人群。
然而,过度锻炼会导致疲劳以及多种健康问题。专家建议进行适度的运动,比如快走、游泳或骑自行车。
无法坚持运动?解密肠道菌群影响运动积极性
保持水分状态
即使是很轻微脱水的情况,也会使健康人的精神疲劳加剧,同时降低运动员的体力和认知功能。
根据多项临床试验的结果,重新补充水分有助于缓解疲劳症状;而保持充足的水分摄入则可以预防疲劳的发生。
按摩
一些临床试验表明,按摩可以有效减轻运动后局部的肌肉疲劳和酸痛感。不过,冷水浸泡似乎对缓解整体疲劳更为有效。
一项小型临床试验发现,将按摩椅与脑按摩相结合的方法能够有效减轻精神疲劳并改善认知功能。
一项荟萃分析表明,按摩疗法,尤其是肌筋膜释放疗法,能够减轻纤维肌痛患者的疲劳感。在一项针对患有这种疾病的女性的临床试验中,按摩疗法与体育锻炼结合使用时,其效果更为显著。
虽然另一项荟萃分析表明,按摩疗法在减轻乳腺癌患者的疲劳感方面是有效的,但由于大多数研究的质量较低且样本量较小,因此缺乏足够的证据来支持按摩疗法用于缓解与癌症相关的疲劳症状。
注:还有一些有限的证据表明,按摩可能有助于缓解慢性疲劳综合症、类风湿性关节炎、多发性硬化症、腰痛、血液透析、脊髓损伤、骨髓移植以及帕金森病引起的疲劳。
寒冷暴露
多项研究指出,在运动前进行冷水浸泡有助于提高运动表现。在运动过程中,仅通过外部降温措施(例如穿着降温衣物)就能有效减少无氧运动带来的疲劳感;而同时采用外部和内部降温措施(例如饮用冷饮料)则能显著提升有氧运动的表现。
同样,多项研究表明,在运动后接触寒冷环境可以缩短 48 至 72 小时内的疲劳感。全身浸入冷水中似乎比接受冷冻疗法更为有效。
阳光照射
许多研究指出,维生素 D 缺乏与疲劳和肌肉无力有关,不过并非所有有这种缺乏症状的人都会出现这些症状。
适量的阳光照射是补充维生素 D 的最佳方式,因为人体所需维生素 D 的 50-90%可以通过阳光摄取获得。此外,你还可以通过食用富含维生素 D 的食物来补充这种维生素,比如富含脂肪的鱼类、肝脏、蛋黄以及乳制品。
维生素D怎么补更有效?结合肠道的吸收、利用、搭配的科学指南
针灸
针灸主要用于治疗慢性疲劳综合症、癌症(尤其是乳腺癌)以及纤维肌痛症引起的疲劳症状。多项荟萃分析表明,针灸可能具有一定的疗效,但同时也指出大多数研究的质量较低。
编辑
有限的证据表明,针灸可能有助于缓解由失眠、帕金森病、多发性硬化症、骨关节炎以及终末期肾病等疾病引起的疲劳症状。
芳香疗法(薰衣草香味)
在一些临床试验中,使用薰衣草精油进行芳香疗法可以减轻血液透析带来的疲劳和焦虑感。不过,并非所有临床试验都证实了这一效果。此外,薰衣草的香气还能缓解那些在需要应对焦虑任务的健康人群的不适感。
脊椎按摩疗法
在 3 项小型试验中,发现脊椎矫正疗法能够减少纤维肌痛和腰痛引起的疲劳感。
充足的卡路里摄入
卡路里是衡量食物所提供的能量的数量,而身体正是利用这些能量来维持各项功能的运转。多项研究表明,严重的卡路里限制不仅会导致体重下降,还会引发精神和身体的疲劳。重要的是,极低的食物摄入量会增加营养缺乏的风险。
平均而言,成年人每天需要 大约2000 卡路里的能量,不过这一数值会因年龄、性别或体力活动情况而有所不同。据估计,15 至 18 岁的男性每天大约需要 3000 卡路里的能量。如果摄入的卡路里少于 1200 卡路里,可能会导致新陈代谢速度减缓,进而引发疲劳。
有趣的是,一项关于重量举运动员的研究发现,当他们的蛋白质含量较高时,低热量饮食能够减少疲劳、压力以及不满感。
咖啡
对 21 项荟萃分析进行的全面临床研究结果表明,咖啡因能够改善多种运动任务的表现,其部分原因在于咖啡因具有抗疲劳的作用。
当咖啡因能够延缓疲劳时,身体的肌肉就能更有力地收缩,从而让人们能够进行更长时间的锻炼。像跑步、慢跑、有氧健身、游泳和骑自行车等有氧运动,从增加训练量中获益最大。
咖啡因还可以提高警觉性,同时减少精神疲劳,尤其是对那些睡眠不足的人来说更为有效。多项研究指出,饮用含咖啡因的饮料后,人们在进行需要高度集中注意力的任务时,疲劳感会减轻。不过,经常摄入咖啡因的人似乎会逐渐产生对咖啡因作用的耐受性。
咖啡、肠道与健康:深入了解咖啡对肠道菌群的调节作用
减少精制碳水化合物的摄入
摄入碳水化合物后,血液中的葡萄糖水平会迅速上升,随后由于胰岛素的释放,葡萄糖水平会急剧下降。当食用含糖饮料、烘焙食品、糖果、白面包和米饭等食物时,这种效应尤为明显且迅速。多项研究指出,频繁摄入这些食品会导致精神和身体上的疲劳。
充足的铁摄入
多项研究指出,铁缺乏(未伴有贫血)会导致疲劳加剧,以及整体健康状况下降。
富含铁的食物包括肉类、禽肉、内脏肉、鱼类、贝类、豆类、种子、绿叶蔬菜,以及强化食品。
充足的维生素 B12/钴胺素摄入
维生素 B12常见来源包括动物制品,如红肉、鱼类、禽肉、酸奶和牛奶。
摄入足够的维生素 B9/叶酸
“叶酸”这个名称来源于拉丁语“folium”,意为“叶子”。因为叶酸主要存在于菠菜、西兰花、卷心菜和羽衣甘蓝等绿叶蔬菜中。其他富含叶酸的食物还包括柑橘类果汁、豆类以及肝脏。
黑加仑
摄入黑加仑果汁能够减轻健康志愿者在身体和精神上的疲劳感。在一项小型试验中,黑加仑中的花青素也能有效缓解打字工作导致的肩部疲劳和僵硬现象。
编辑
在骑行者中,黑加仑果粉能够减少运动过程中的乳酸积累,并改善休息时的心血管功能。而在登山者中,黑加仑提取物则能够延长攀爬时间和总攀爬时长。
解决食物过敏问题
身心疲劳是人们对食物成分如麸质、乳糖、FODMAPs以及凝集素产生敏感的常见症状。
如果怀疑自己的低能量水平是由于对某些食物的不耐受引起的,建议咨询过敏专家或营养师,进行食物敏感性检测。一般采用排除法饮食疗法,以帮助确定不耐受的原因。
黑巧克力
富含黄酮类的可可和黑巧克力能够被证明能够减轻那些需要持续进行脑力劳动的人以及患有慢性疲劳综合症和多发性硬化症患者的身体和精神疲劳。
肌酸
肌酸是一种在体内自然产生并储存在肌肉中的物质。在体力活动过程中,肌酸会被释放出来,为身体提供所需的能量以维持活动。
多项试验表明,补充肌酸可以有效提高运动表现,并使肌肉疲劳程度减少 14.5%。
肌酸还可以改善认知功能,减少精神疲劳。在那些需要完成需要持续集中注意力的任务或遭受睡眠不足困扰的人群中,肌酸发挥了这样的作用。此外,对于素食者来说,由于他们的饮食中缺乏这种化合物的主要来源,肌酸也有类似的益处。在一项针对老年人的研究中,补充肌酸有助于逆转认知衰退。
辅酶 Q10
在两项针对健康人的临床试验中,口服辅酶 Q10 能够减轻疲劳,并提高体育锻炼时的表现。
有研究指出,定期补充辅酶 Q10 可以有效缓解患有纤维肌痛、多发性硬化、肌肉萎缩以及双相情感障碍等疾病患者的疲劳症状及其他相关症状。
一种口服补充剂,含有辅酶 Q10 和 NADH 成分,能够减轻疲劳,提高慢性疲劳综合症患者的运动表现。
益生菌益生元
对慢性疲劳综合征患者进行的干预主要集中在使用双歧杆菌和乳酸菌菌株上,这些菌株在减少炎症和氧化应激方面始终表现出良好的效果,并且伴随着疲劳感的降低。例如,在8周内使用干酪乳杆菌菌株Shirota的益生菌治疗可显著降低慢性疲劳综合征(ME/CFS)患者的炎症标志物。
使用多菌株益生菌制剂,这些制剂可以对抗抗生素耐药性病原体,增强粘膜屏障并调节免疫反应,包括制剂鼠李糖乳杆菌联合干酪乳杆菌(Ramnoselle) 和干酪乳杆菌联合乳酸双歧杆菌(Cytogenex) 在 8 周后有效改善疲劳(Chadler 评分),这归因于炎症减少,与基线相比,CRP 水平降低了近 30%,免疫力增强,其特征是 IgM 显着增加(是基线值的三倍)和 CD4/CD8 比率降低。
用嗜热链球菌 BT01、短链球菌 BB02、动物芽孢杆菌乳酸亚种 BL03、动物芽孢杆菌亚种 BI04、嗜酸乳杆菌 BA05、植物乳杆菌 BP06、副干酪乳杆菌 BP07 和瑞士乳杆菌 BD08 的八种活菌株和冻干菌株组成的益生菌联盟进行处理 (VSL#3®),与安慰剂相比,4 周后长期COVID患者的Chalder疲劳量表 (CFS)疲劳评分显著降低,安慰剂在干预后维持 4 周。
如果你要补充益生菌 ——益生菌补充、个体化、定植指南
L-肉碱
对于患有慢性疲劳综合症的人来说,连续两周补充 L-肉碱可以改善症状,而且耐受性良好。其衍生的化合物乙酰-L-肉碱和丙酰-L-肉碱也分别对缓解精神和整体疲劳有显著效果。
在老年受试者中,L-肉碱和乙酰-L-肉碱都能有效减轻身体和精神的疲劳感(约减少 40%),增加肌肉质量,并改善认知功能。
一些试验表明,L-肉碱能够有效缓解由纤维肌痛、甲状腺功能减退、肝性脑病、透析相关贫血以及治疗肾癌和丙型肝炎的药物引起的疲劳症状。
虽然 L-肉碱在缓解多发性硬化和癌症患者的疲劳症状方面已被广泛研究,但研究结果并不一致。两项荟萃分析表明,L-肉碱在这两种情况下几乎没有效果或根本无效。
牛磺酸
牛磺酸是一种存在于几乎所有身体组织中的氨基酸,对肌肉的正常功能至关重要。补充牛磺酸可以帮助恢复运动后肌肉中降低的牛磺酸水平。
在患有心力衰竭的患者以及参加短距离自行车运动的运动员中,补充牛磺酸能够减少疲劳并提升身体表现。然而,在另一项针对铁人三项运动员的研究中,牛磺酸并未显示出任何效果。
多项研究指出,将牛磺酸与咖啡因结合使用能够减轻长时间驾驶带来的疲劳感。
人参
在多项针对健康志愿者和慢性疲劳综合征患者的研究中,人参提取物治疗能够减轻疲劳的严重程度。据报道,人参还能减轻癌症和多发性硬化症患者的疲劳感。
编辑
NAD+/NADH
烟酰胺腺嘌呤二核苷酸(NAD+)是一种辅酶,它能够通过将电子从一个分子转移到另一个分子来促进多种代谢反应的发生。
在几项初步试验中,补充这种辅酶或其还原形式 NADH 有助于减轻运动引起的疲劳以及慢性疲劳综合症的症状。当同时补充 NADH 和辅酶 Q10 时,治疗效果更为显著。
关于长寿因子(NAD+)你了解多少?——健康益处及如何提高补充效果
β-丙氨酸
在多项针对不同年龄人群的研究中,β-丙氨酸能够延缓疲劳现象,其效果可达 36.5%。这可能得益于β-丙氨酸能减少高强度无氧运动过程中体内的酸性物质积累。
不过,需要注意的是,这种物质的安全性尚未得到充分验证。此外,在患有慢性疲劳综合症的人群的尿液中检测到了较高水平的这种化合物。目前还不清楚,是否通过补充β-氨基酸来提升血液中的β-氨基酸含量,真的能够引发慢性疲劳综合症。
褪黑素
褪黑素通常在睡前服用,被广泛用于缓解时差症状,如疲劳和睡眠不规律的问题。
在一项针对青少年运动员的临床试验中,运动后在傍晚时分服用褪黑素能够改善疲劳感、睡眠质量、认知表现以及整体健康状况。
褪黑激素对于患有慢性疲劳综合症的人来说通常无效,除非同时伴有这种激素分泌延迟的情况。褪黑素仅能在有睡眠问题的癌症患者中缓解疲劳症状。同样,它也有助于减轻患有创伤性脑损伤或正在接受手术患者的疲劳和睡眠障碍。
褪黑素的产生、功能、干预及其与肠道菌群的关系
支链氨基酸
补充支链氨基酸如亮氨酸、异亮氨酸和缬氨酸,比单纯补充其他氨基酸更能帮助运动后恢复。因为这些氨基酸能够减少肌肉疼痛、损伤以及疲劳感。
它们似乎还能通过补充运动过程中消耗的氨基酸来提高运动表现,不过并非所有研究都认为这种补充方法有效。然而,过量的这些物质会通过增加氨的产生而导致疲劳。
黄芪
在一项针对中风康复患者的临床试验中,口服黄芪补充剂显著改善了患者的疲劳感、认知功能以及生活质量。在一项针对晚期癌症患者的初步研究中,静脉注射黄芪提取物有助于缓解患者的疲劳症状。
一种由黄芪和红艾草提取物制成的制剂,在连续使用 4 周后,能够显著减轻慢性疲劳综合症患者的疲劳症状。这是一种含有黄芪的多味中药配方,能够增强运动员的体力,缩短他们的恢复时间。
D-核糖
一项针对纤维肌痛或慢性疲劳综合症患者的初步研究表明,每天摄入 5 克 D-核糖能够提升 45%的精力水平,并改善 30%的整体健康状况。
据报道,D-核糖还能有效缓解老年人的身体和精神疲劳。
灵芝
在一项针对神经衰弱患者的临床试验中,从灵芝中提取的复合碳水化合物使患者的疲劳感减少了 28%,且耐受性良好。
编辑
同样,灵芝孢子粉能够降低乳腺癌女性的疲劳、焦虑、抑郁症状,同时提升她们的主观幸福感。
5-HTP
在一项针对纤维肌痛症患者的小型临床试验中,给部分患者补充5-羟色氨酸后,有一半患者的疲劳症状及其他相关症状得到了改善。
姜黄素
在一项针对有职业压力相关焦虑与疲劳症状的患者的临床试验中,一种含有高生物利用度的姜黄素和葫芦纤维的组合制剂,其疗效优于传统的姜黄素制剂。
姜黄素与肠道微生物群之间的互作:姜黄素对健康影响的益处
编辑
注:这篇文章仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
谷禾健康
很多克罗恩病患者都有过相似的困惑:炎症指标似乎有所下降,腹痛和腹泻却不一定完全好转;又或者明明已经规律治疗,吃东西后仍容易胀痛,肠道慢慢变得狭窄。这样的经历并不意味着患者做得不够好。而是克罗恩病涉及免疫、肠黏膜屏障、遗传、环境及肠道微生物等多重因素,而肠道纤维化正是其中最令人棘手的环节之一。
可以把肠道想象成一条既要消化食物、又要维持屏障功能以抵御细菌和外界刺激的长廊。它的内壁需要足够柔软,才能随着食物通过而舒张;也需要足够坚固,才能把细菌和外界刺激挡在合适的位置。反复炎症就像反复受伤。正常的修复本应在伤口愈合后慢慢停下,但当修复信号持续存在时,组织会不断沉积类似“疤痕”的细胞外基质,肠壁逐渐变厚、变硬,甚至形成狭窄——这一过程就是肠道纤维化。
越来越多的实验和临床线索提示,微生物失调可能通过多条路径参与肠道纤维化进程。在克罗恩病(CD)中,常可观察到微生物多样性下降、部分促炎相关菌群相对增多,以及产短链脂肪酸、支持屏障功能的菌群减少。此类改变并不意味着某一种细菌能够单独导致肠道纤维化,更可能反映了微生物、宿主免疫、屏障状态和局部组织环境之间失衡后的相互放大。
屏障受损后,脂多糖、鞭毛蛋白和细胞壁成分等微生物信号更容易接触肠壁深层细胞,并通过Toll样受体、NOD样受体等模式识别通路激活上皮细胞、成纤维细胞及免疫细胞;随后,TGF-β、TL1A/DR3、IL-33/ST2、IL-6/STAT3等信号可推动成纤维细胞活化和细胞外基质沉积。与此同时,微生物还可通过影响巨噬细胞极化、T细胞反应、氧化应激和肠系膜脂肪重塑,构建持续存在的促纤维化微环境。
尤其是黏附侵袭性大肠杆菌(AIEC)等特定菌株,因其黏附上皮、侵入细胞、形成生物膜及维持慢性刺激的能力,常在CD狭窄相关病灶中受到关注。微生物代谢物同样可能是连接菌群与肠壁重塑的重要媒介:短链脂肪酸具有维持屏障和调节免疫的潜在保护作用,而L-天冬氨酸、三甲胺及氧化应激相关信号则被视为值得进一步验证的促纤维化线索。
本文围绕克罗恩病肠道纤维化与肠道微生物组的关系,概述纤维化的病理基础及其与慢性炎症的联系,分析微生物失调、屏障损伤、免疫异常、爬行脂肪和代谢物改变在纤维化中的作用,并讨论AIEC等潜在致病菌及关键宿主信号通路。进一步评估饮食和代谢调节、功能菌干预、粪便微生物移植、抗黏附治疗及宿主信号靶向等策略的潜力与局限。肠道微生物群是理解CD纤维化的重要线索和潜在靶点,而非单一病因或成熟疗法;未来仍需高质量临床研究明确患者分型、作用机制及获益人群,以推动精准、安全的抗纤维化治疗。
什么是克罗恩病肠道纤维化?
克罗恩病中的肠道纤维化,是肠道在长期、反复炎症损伤后发生的异常修复过程:成纤维细胞和肌成纤维细胞持续被激活,产生并沉积过多胶原蛋白、纤维连接蛋白等细胞外基质,使肠壁逐渐增厚、变硬、失去弹性,并最终造成肠腔狭窄、梗阻。
关于肠道狭窄机制的原理图
编辑
doi: 10.1177/17562848221104951.
纤维化不是一次炎症,而是修复失控
肠道纤维化,可以从一个贴近生活的角度理解:皮肤擦伤后,身体会启动修复:先止血,再清理受损组织,随后长出新的组织。大多数时候,伤口会慢慢收口,修复程序也会逐步关闭。肠道的修复过程同样如此,只是它面对的环境更加复杂:肠腔里持续有食物、细菌和代谢物通过,肠壁每天都要经历伸缩和摩擦。当炎症反复出现,修复系统就可能长期处在“还没有结束”的状态,最终把本来灵活的肠壁修成了僵硬的狭窄段。
肠道纤维化的病理生理框架:超越慢性炎症
编辑
Kim JH,et al.Intest Res.2026
肠道纤维化的机制
克罗恩病相关肠道纤维化是一个复杂且动态的病理过程,涉及多种因素之间的相互作用与共同影响。深入理解这些因素及其作用机制,对于明确纤维化的发生发展,并开发更具针对性的治疗方法至关重要。
克罗恩病肠道纤维化的主要病理机制
编辑
doi: 10.3390/jcm14124060.
导致肠道纤维化的主要病理机制及因素
编辑
doi: 10.3390/jcm14124060.
(1)参与肠道纤维化的细胞
成纤维细胞、肌成纤维细胞、平滑肌细胞及巨噬细胞等共同参与纤维化。慢性炎症和生长因子刺激可促使这些细胞活化、增殖,并增加胶原等细胞外基质的生成。
活化的成纤维细胞可转化为表达α-SMA的肌成纤维细胞;狭窄部位的肌成纤维细胞更倾向于促进胶原沉积,且MMP3表达降低,不利于基质降解。平滑肌细胞增生、肥大及其与周围间充质细胞的相互作用,也会加重肠壁重塑。
(2)肠道纤维化的分子机制
IL-1、IL-4、IL-6、IL-13、IL-17和IL-33等促炎、促纤维化细胞因子,可促进成纤维细胞活化、上皮—间充质转化及胶原沉积;IL-10、IL-22等则具有一定抗纤维化作用。
TGF-β是核心调节因子,可通过Smad2/3通路上调Ⅰ型胶原和纤维连接蛋白表达。PDGF、CTGF和bFGF进一步促进间充质细胞的迁移、增殖和基质合成。
(3)细胞外基质的改变
细胞外基质过度沉积是纤维化和狭窄形成的直接基础。慢性炎症下,胶原、纤维连接蛋白等成分持续累积;虽然基质金属蛋白酶(MMPs)参与基质降解,但其与基质金属蛋白酶组织抑制剂(TIMPs)之间的失衡总体倾向于减少基质降解、维持基质稳定。组织硬度增加又可刺激细胞继续沉积基质,形成正反馈。
(4)爬行脂肪的作用
爬行脂肪是肠系膜脂肪组织包绕病变肠段的表现,其中的脂肪细胞和免疫细胞可分泌IL-6、TGF-β、TNF-α等介质,招募巨噬细胞和T细胞,并促进细胞外基质沉积。其与肠道炎症及细菌转位相互作用,持续维持局部促炎和促纤维化环境。
注:爬行脂肪(creeping fat)是克罗恩病的典型肠系膜改变,指肠系膜脂肪组织异常增生,并逐渐向病变肠段表面延伸、包裹肠壁,有时可覆盖肠道周径的50%以上。
(5)肠道微生物群与肠道纤维化
肠道菌群失调和屏障损伤可使细菌成分进入肠壁,通过TLR、NOD2和NF-κB等通路激活免疫细胞及肌成纤维细胞。AIEC可借助炎症环境持续定植,并通过IL-33/ST2等信号促进纤维化。
菌群代谢异常,尤其是产短链脂肪酸菌减少,也可能削弱屏障保护和免疫调节,从而促进纤维化进展。
谁在制造“疤痕”:成纤维细胞与肌成纤维细胞
狭窄肠段中存在不同的间充质细胞亚群,其中部分细胞表现出较强的促纤维化特征;单细胞研究还提示,某些成纤维细胞亚群与细胞外基质重塑相关。这说明纤维化并不是一群完全相同的细胞在做同一件事,而是多个细胞群体在不同位置、不同时间共同参与。
• 成纤维细胞:它们负责合成胶原蛋白、纤维连接蛋白等细胞外基质,并参与组织修复。
• 肌成纤维细胞:既制造基质,也产生收缩力,改变局部组织结构。短期活化有助于修复,但长期活化可能使肠壁增厚、变硬并收紧,促进狭窄形成。
✔ 对患者而言,这个认识有一个重要意义:未来治疗未必只是“全面抑制成纤维细胞”。更理想的方向可能是识别真正处于异常活化状态的细胞,阻断它们收到的错误信号,同时保留正常修复所需要的能力。
细胞因子是“传递信号”
肠道细胞并非独立运作,而是通过细胞因子传递信息,识别损伤、招募免疫细胞并启动修复。
• 转化生长因子β1(TGF-β1):在纤维化过程中,转化生长因子β1(TGF-β1)是重要的促纤维化信号,可促进肌成纤维细胞活化,增加胶原蛋白及其他基质成分的合成。
资料显示,Th2和Th17的免疫环境相关信号、IL-6/STAT3、TL1A/DR3及IL-33/ST2通路也可能参与促纤维化网络。各通路并非彼此孤立,可能相互放大,并在不同模型和病程阶段发挥不同作用。
✔ 注意:某条通路在实验中有效,并不意味着它是所有患者的“总开关”。关键在于明确不同患者、病程阶段和组织环境中的主导信号,并评估阻断该信号的获益与风险。
组织变硬会反过来加剧纤维化
纤维化还有一个容易被忽略的特点:它可能形成自我强化的循环。细胞外基质沉积增多后,组织会变得更硬。细胞能够感知周围环境的硬度,并通过机械敏感信号改变自己的形态、黏附和增殖状态。处在较硬基质上的成纤维细胞,可能更容易维持活化状态,继续制造更多基质。
基质变硬增强局部黏附、增殖和促纤维化
研究指出,基质刚度变化可增强局部黏附、增殖和促纤维化信号,并帮助解释为什么某些狭窄即便在炎症活动减少后仍可能持续。TGF-β/Smad信号、机械敏感通路以及肠平滑肌和肠系膜脂肪之间的联系,都可能参与这一自我强化过程。
表观遗传改变:细胞记住“曾经损伤”
狭窄部位的肌成纤维细胞还可能发生更深层的分子重塑。所谓表观遗传,可以简单理解为细胞在不改变基因顺序的情况下,改变某些基因的开关状态。经历长期炎症和机械刺激后,细胞可能更容易打开促纤维化程序,也更难回到安静状态。
Smad7减少会使纤维化更容易持续
狭窄来源的肌成纤维细胞存在增强的TGF-β信号、较高的相关转录活动以及Smad7减少等变化。Smad7通常能够对TGF-β受体下游信号起到一定的抑制作用,因此其减少可能使促纤维化反应更容易持续。
纤维化并不只是“炎症还在不在”的问题,也可能是细胞状态已经被重新编程。未来如果能够让这些细胞重新获得停止修复、清除多余基质的能力,或许比单纯压制某一个炎症指标更能解决问题。
给患者的启发:不要把复杂病程全归咎于个人生活习惯
肠道纤维化是持续损伤、异常修复、细胞因子网络和组织硬化共同作用的结果。它与炎症相连,却不等同于炎症;需要同时关注免疫控制和组织重塑。
患者很容易产生自责:是不是自己吃错了?或者运动不够、作息不好,才让病情越来越复杂?
生活方式确实会影响整体健康和疾病管理,但肠道纤维化是多因素过程,涉及遗传易感、免疫调控、屏障状态和组织反应,不能简单归结为个人“做得不对”。
更合理的做法,是把可以控制的事情做好:按医嘱治疗,关注症状变化,接受必要的影像和内镜评估,保持适合自身耐受的营养摄入,并在出现梗阻风险信号时及时就医。
上一章讲了“肠壁为何变硬”,本章进一步探讨肠道微生物组参与其中的途径。目前较清晰的框架分为三层:第一,肠壁细胞直接感知微生物信号;第二,上皮细胞与免疫细胞接力,将局部刺激放大为炎症和修复信号;第三,微生物代谢物及组织外环境的变化,使这种反应持续存在。
肠道微生物群影响肠道成纤维细胞的机制
编辑
doi: 10.3389/fmed.2022.826240.
第一条路径:成纤维细胞直接识别微生物成分
人们通常认为,只有免疫细胞能识别微生物。实际上,肠道肌成纤维细胞等间充质细胞也表达多种模式识别受体,可识别脂多糖、鞭毛蛋白等微生物相关分子模式。LPS/TLR4、鞭毛蛋白/TLR5和PG-PS/NOD2/TLR2等信号轴,可能促进成纤维细胞活化及细胞外基质(ECM)重塑。
微生物失调介导的肠道屏障破坏和纤维化途径激活
编辑
Kim JH,et al.Intest Res.2026
LPS/TLR4信号促进促纤维化细胞因子释放
肠道肌成纤维细胞中的 LPS/TLR4 信号可激活 NF-κB,促进促纤维化因子释放和细胞外基质(ECM)生成;同时抑制 Smad7、TGF-β1 诱饵受体等负调控因子,间接放大 TGF-β 信号,从而加剧纤维化。
LPS–TLR4信号通过直接和间接机制促进纤维生成
编辑
Kim JH,et al.Intest Res.2026
此外,LPS 还可通过非 TGF-β 依赖机制直接诱导人类成纤维细胞表达胶原基因,显示其自身具有促纤维化作用。
鞭毛蛋白产生菌对促纤维化刺激有重要影响
鞭毛蛋白/TLR5信号是另一条独立于TGF-β的促纤维化通路。在人肠间质细胞(HIMFs)中,鞭毛蛋白通过TLR5/MyD88/PI3K/AKT/mTOR通路诱导ECM蛋白生成,并与TGF-β1协同作用。体内研究显示,α-SMA⁺细胞缺失MyD88可显著减轻肠道纤维化,凸显该通路的重要性。
鉴于肠道微生物组持续存在,且克罗恩病(CD)中鞭毛蛋白产生菌(如大肠杆菌和沙门氏菌)相对富集,鞭毛蛋白可能是持续存在且与疾病相关的促纤维化刺激。
✔ 保护屏障对阻断纤维化非常重要
只要微生物成分越过受损屏障,接触到组织深层,就有可能成为这些细胞接收到的外部信号。因此,保护屏障和减少异常暴露,可能是阻断纤维化的重要前置环节。
第二条路径:上皮细胞受刺激后把信号传给成纤维细胞
肠上皮细胞位于肠腔和身体组织之间,是微生物信号最早接触到的界面之一。它们受到刺激后,会释放细胞因子、趋化因子和氧化应激相关信号,影响周围的免疫细胞与间充质细胞。于是,微生物不必直接作用于成纤维细胞,也可能通过上皮细胞完成“间接转接”。
直接和间接微生物组驱动的纤维化通路
编辑
Kim JH,et al.Intest Res.2026
侵袭性病原菌可诱导上皮产生促纤维化信号
某些侵袭性微生物(如Shigella flexneri strain M90T)可诱导上皮细胞产生IL-6等促纤维化相关信号;炎症因子组合也可能上调上皮细胞中的TGF-β表达,随后使肌成纤维细胞增加胶原产生。
此外,活性氧可促进细胞外基质沉积,并通过TGF-β/Smad通路推动纤维化反应。
编辑
Kim JH,et al.Intest Res.2026
若上皮损伤持续存在,这些信号可能长期增强,导致炎症反应持续及组织修复异常。因此,修复上皮屏障与控制炎症并非相互替代,而是需要协同进行。
第三条路径:巨噬细胞把短暂刺激变成长时间的修复信号
巨噬细胞既参与损伤清除,也参与组织修复,并会随微环境改变功能状态。部分状态偏向防御,另一些则偏向修复与重塑;若修复反应持续过久,可能释放过量TGF-β等信号,促进成纤维细胞产生细胞外基质。
M2巨噬细胞有时会促进肠道纤维化
M1巨噬细胞通常是促炎的,由Th1细胞因子如TNF-α和IFN-γ诱导,而M2巨噬细胞则表现出抗炎和促纤维化特性,由Th2细胞因子IL-4和IL-13促进。
M2巨噬细胞主要通过释放TGF-β来促进纤维化。此外,M2巨噬细胞可以招募Th2淋巴细胞,进一步增强纤维生成信号。一项最新研究表明,凋亡的肠上皮细胞诱导M2巨噬细胞中Mer受体酪氨酸激酶(MerTK)/细胞外信号调节激酶(ERK)通路的激活,导致TGF-β1分泌、成纤维细胞激活和细胞外基质(ECM)产生,最终促进克罗恩病中的肠道纤维化。
注:不过,M2巨噬细胞在肠道纤维化中的具体作用仍待明确,不能将“M2”简单视为单一、固定的细胞类型。
微生物组还可能通过调节T细胞和抗原呈递细胞,将局部反应扩展至更广泛的免疫网络。例如,口腔来源细菌、牙周炎症与Th17反应的联系提示,不同部位的微生物群及免疫状态可能相互影响;抗原呈递细胞产生的TL1A则可能增强T细胞活化,并进一步作用于表达DR3的成纤维细胞。
编辑
Kim JH,et al.Intest Res.2026
粘附侵袭性大肠杆菌,值得重点关注
粘附侵袭性大肠杆菌(AIEC)在克罗恩病肠道纤维化中值得重点关注,主要基于以下几点:
①与狭窄型病变密切相关:AIEC常在克罗恩病狭窄病灶中检出,黏膜阳性率约为21%~62%,提示其可能参与纤维狭窄形成,而不仅是炎症的伴随现象。
②具有黏附、侵袭和持续定植能力: AIEC可通过FimH与上皮细胞CEACAM6结合,优先定植于回肠黏膜;同时能够破坏上皮屏障并侵入黏膜,增加肠壁暴露于细菌及其组分的机会。
③可直接触发促纤维化信号: AIEC来源的LPS和鞭毛蛋白可分别激活TLR4、TLR5等模式识别受体,诱导NF-κB、PI3K/AKT/mTOR及IL-33/ST2等通路,促进成纤维细胞活化、胶原蛋白和ECM生成。其中部分作用可独立于TGF-β,说明AIEC可能通过多条机制推动纤维化。
④连接上皮、免疫与间充质反应: AIEC鞭毛蛋白可增强上皮细胞IL-33/ST2信号;同时,AIEC还能刺激CX3CR1⁺抗原呈递细胞产生TL1A,进一步激活T细胞及DR3⁺成纤维细胞,形成持续的促纤维化网络。
⑤具有明确的精准干预价值: AIEC存在菌株异质性,适合开展个体化检测和治疗。阻断FimH介导的黏附、破坏生物膜、使用噬菌体或细菌素选择性清除AIEC,可能成为针对微生物—纤维化轴的治疗策略。但目前相关证据仍以机制研究和动物实验为主,临床有效性有待进一步验证。
AIEC菌株在肠道中的持续定植会促进肠道纤维化
编辑
doi: 10.3389/fmed.2022.826240.
微生物移位:肠道屏障失守及其向肠系膜的延伸
屏障受损时,活菌或微生物成分可由肠腔进入黏膜深层,甚至抵达肠系膜脂肪组织,这一过程称为微生物转位。由此,肠系膜脂肪组织可能持续暴露于微生物信号,成为肠道炎症和纤维化反应的参与者。
肠系膜脂肪组织可识别脂多糖(LPS)、鞭毛蛋白等病原体相关分子模式(PAMP),并通过TLR、NLR等先天免疫通路持续响应,进而影响巨噬细胞状态、脂肪组织重塑及平滑肌反应,可能构成“爬行脂肪”与肠道纤维化之间的联系。
因此,肠道纤维化是肠腔、肠壁、免疫细胞、脂肪组织及微生物代谢物相互作用的结果。干预可能需要同时减少异常微生物信号转位、维护肠道屏障,并阻断不同组织间的促炎和促纤维化放大效应。
很多人提到肠道疾病时,首先想到的是肠腔和肠黏膜。但在克罗恩病中,肠道周围的肠系膜脂肪组织也可能发生明显变化。它不再只是被动包裹肠管的“填充物”,而可能参与免疫反应、脂肪代谢和组织重塑。
临床上常用“爬行脂肪”描述包绕炎症肠段、沿肠管分布的肠系膜脂肪改变。
脂肪组织也是会“说话”的器官
脂肪细胞能够释放脂肪因子、细胞因子、脂肪酸和生长因子。正常情况下,这些信号参与能量储存和组织稳态。
肠系膜脂肪驱动炎症纤维化
当肠道长期炎症、微生物成分进入肠系膜后,脂肪组织的细胞组成和分泌模式可能改变。它们释放的介质会作用于邻近肠壁,影响免疫细胞、平滑肌细胞和成纤维细胞。
研究发现,微生物对肠系膜脂肪组织中的脂肪细胞和前脂肪细胞的刺激,可能有助于爬行脂肪形成以及克罗恩病肠道纤维化发展。病变脂肪组织可出现成熟脂肪细胞减少、前体细胞增多、促炎介质增加和成纤维细胞样细胞扩增等变化。
编辑
Kim JH,et al.Intest Res.2026
✔ 提示:
因此,当患者看到影像报告或手术记录中提到肠系膜改变时,不必把它理解成与肠道完全无关的“附带现象”。它可能反映的是肠壁和周围组织正在共同应对长期炎症。当然,具体意义仍需结合影像、内镜、病理和临床表现判断,不能仅凭一个描述就推断疾病一定会如何发展。
脂肪组织可能转向成纤维细胞样状态
研究显示,脂肪细胞具有一定可塑性。在微生物刺激、炎症及TGF-β等信号作用下,成熟脂肪细胞可能去分化为前体样细胞,并进一步转化为具有肌成纤维细胞特征的细胞,直接参与细胞外基质生成。DPP4相关前体细胞和TGF-β信号可能是这一过程的重要线索。
这意味着,脂肪组织中的纤维化细胞来源可能比过去认识的更复杂,不一定仅来自传统成纤维细胞。就像原本用于储存能量的仓库,在长期炎症刺激下,部分细胞可能转而参与组织“加固”;短期有助于维持结构,长期却可能使周围组织变得狭窄、僵硬。
“爬行脂肪”可能形成肠壁外的放大回路
肠系膜脂肪组织受到微生物信号和炎症介质激活后,可能释放更多促炎因子,增强M2样巨噬细胞、Th1/Th17反应及平滑肌改变。
M2a巨噬细胞极化促进成纤维细胞激活和爬行脂肪形成
编辑
Kim JH,et al.Intest Res.2026
肠腔、肠壁与脂肪组织相互促纤维化
肠壁炎症又会进一步损伤屏障,使更多微生物成分接近肠系膜,进而形成肠腔、肠壁与脂肪组织相互促进的恶性循环。
此外,炎症肠段平滑肌细胞释放的纤维连接蛋白等信号,可能促进前脂肪细胞迁移;当组织力学环境改变、Hippo等通路失衡时,脂肪细胞也更易转化为促纤维化细胞。
注:Hippo信号通路是一条在进化上高度保守的激酶信号转导通路。
这并不意味着“脂肪越多,纤维化越严重”,也不能用单纯减重替代克罗恩病治疗。关键在于组织微环境和细胞功能,而非体重本身。临床上更重要的是识别肠系膜脂肪释放的促病信号,并在保护正常组织功能的前提下,阻断其与肠壁之间的异常联系。
如果说微生物是肠道中的“居民”,那么微生物代谢物就是它们持续发出的化学信号。不同菌群利用膳食纤维、蛋白质、胆碱、磷脂酰胆碱和L-肉碱等原料后,会产生不同物质。这些代谢物不仅能作用于肠上皮细胞,还会影响巨噬细胞、T细胞、成纤维细胞和肌成纤维细胞;当肠屏障受损时,它们还可能进入肠壁深层组织,甚至进入全身循环。
因此,判断微生物组的意义,不能只看“有哪些菌”,还要关注“这些菌正在产生什么”?相同的菌群数量,在不同饮食、炎症和宿主代谢环境下,可能产生不同的功能结果。代谢物正是连接微生物与宿主的重要中间层。
肠腔狭窄、腹胀人群摄入纤维需注意
短链脂肪酸(SCFAs)主要包括乙酸盐、丙酸盐和丁酸盐,通常由肠道细菌发酵膳食纤维产生。其中,丁酸盐是结肠上皮细胞的重要能量来源,也是目前研究最充分的保护性代谢物之一。
与丁酸生成相关的菌群包括:
粪杆菌属,尤其是普拉梭菌(Faecalibacterium prausnitzii);
罗氏菌属(Roseburia);
真杆菌属(Eubacterium);
厌氧棒菌属(Anaerostipes);
粪球菌属(Coprococcus);
罕见小球菌属(Subdoligranulum);
厌氧丁酸菌属(Anaerobutyricum);
以及部分 Romboutsia、Anaerotruncus 和 Lachnospiraceae_NK4A136 group。
在克罗恩病相关的菌群失调和纤维化表型中,上述部分产短链脂肪酸菌群可能减少,尤其是普拉梭菌和部分毛螺菌科成员。它们的减少可能意味着肠道发酵膳食纤维、维持屏障和调节免疫的能力下降。
丁酸盐可能通过多条路径发挥保护作用
(1)丁酸盐可被肠上皮细胞利用:支持上皮细胞的能量代谢和修复。它还可能促进紧密连接蛋白和黏液屏障相关功能,帮助减少肠腔内微生物成分向固有层和肠系膜转移。
(2)丁酸盐能够抑制组蛋白去乙酰化酶:改变部分炎症和免疫相关基因的表达。通过这一机制,它可能促进调节性T细胞(Treg)分化,帮助恢复Th17/Treg之间的平衡,降低持续性免疫激活。
(3)短链脂肪酸可影响巨噬细胞的功能状态:部分研究提示,丁酸和相关产物有助于诱导具有抗炎或组织修复特征的巨噬细胞亚型,并促进IL-10等调节性因子产生。普拉梭菌及其代谢物还可能抑制Th17反应,从而减少IL-17对肌成纤维细胞的刺激。
(4)短链脂肪酸可能直接或间接影响成纤维细胞:它们一方面减少上皮损伤和炎症介质释放,另一方面可能降低TGF-β、IL-6等促纤维化信号的持续刺激,从而减少胶原蛋白和其他细胞外基质的异常沉积。
并非所有人都适合增加纤维摄入来补充短链脂肪酸
需要注意的是,这些保护作用主要来自细胞、动物和部分转化研究。即使短链脂肪酸具有潜在益处,也不代表患者都适合立即大量增加粗纤维或自行服用丁酸盐补充剂。
对于已经存在肠腔狭窄、腹胀、腹痛或梗阻风险的人群,过多不易消化的膳食纤维反而可能增加不适。饮食调整应结合疾病活动度、狭窄位置、营养状态和个人耐受性进行。
L-天冬氨酸:肠道狭窄的促纤维化候选物
与短链脂肪酸不同,L-天冬氨酸可能代表一类具有促纤维化作用的代谢信号。多组学研究发现,L-天冬氨酸水平与克罗恩病肠道狭窄或纤维化程度存在相关性,其来源可能涉及Saccharimonadales等微生物类群。
L-天冬氨酸能驱动肠壁纤维化
在体外实验中,L-天冬氨酸能够刺激人肠道肌成纤维细胞,诱导促纤维化基因表达;在动物模型中,它也可能加速细胞外基质沉积和肠壁纤维化。这提示,某些氨基酸代谢变化可能不仅是炎症的伴随现象,还可能直接参与成纤维细胞的功能改变。
其可能的过程包括:
目前,抑制L-天冬氨酸的合成、转运或细胞摄取被视为潜在研究方向。但“代谢物升高”“能够影响细胞”和“针对它治疗能够改善患者狭窄”是三个不同层次的问题,现有证据尚不足以支持患者自行通过饮食或补充剂降低L-天冬氨酸。
三甲胺:可能在不同组织中影响纤维化
三甲胺(TMA)和三甲胺-N-氧化物(TMAO)体现了“微生物—肝脏—宿主”共同决定代谢物效应的过程。
TMA与TMAO影响纤维化的多重因素
TMA和TMAO在不同组织纤维化研究中被认为可能通过氧化应激、TGF-β/Smad3、NLRP3炎症小体和PERK-mTOR等路径影响纤维化;材料同时指出,克罗恩病患者的TMA和TMAO变化可能存在复杂性,不能简单以“越高越坏”概括。最终效应取决于:
这表明,代谢物水平不仅取决于菌群,还受饮食原料、微生物加工、肝脏转化及宿主清除能力共同影响。因此,未来的代谢物干预需综合考虑饮食、菌群和宿主代谢,而不能仅依赖单一益生菌或保健品。
氧化应激:不利代谢环境如何反过来改变菌群
肠道炎症不仅改变菌群组成,也会改变肠道的氧化环境。炎症细胞和肠上皮细胞可产生过量活性氧(ROS),使肠腔和黏膜局部处于更强的氧化应激状态。
炎症氧化应激驱动产丁酸菌流失
这种环境对严格厌氧的产丁酸菌并不友好。例如,罗氏菌属和臭气杆菌属(Odoribacter)可能因氧化压力增加而减少;而菌群保护功能下降后,屏障修复能力进一步减弱,形成恶性循环。
研究还提示,P2X7受体可能是连接炎症、氧化应激和菌群变化的关键节点。P2X7受体被激活后,可促进NLRP3炎症小体活化并增加ROS生成,进一步推动IL-1β等炎症信号释放。炎症和氧化应激增强后,又可能加剧产丁酸菌的流失。
这一过程可以概括为:炎症增强 → P2X7受体激活 → NLRP3炎症小体和ROS增加 → 产丁酸菌减少 → 屏障功能下降 → 微生物及其产物转位增加 → 炎症和纤维化进一步加重。
相反,抑制P2X7/NLRP3轴、增强Nrf2等抗氧化防御通路,理论上可能减轻氧化环境,为有益厌氧菌恢复创造条件。但这目前仍主要属于机制研究和早期转化方向,并不意味着患者可以自行使用相关抑制剂或抗氧化补充剂。
色氨酸代谢物:吲哚、AHR与肠屏障修复
色氨酸是另一类重要的微生物代谢底物。部分肠道细菌能够将色氨酸转化为吲哚及其衍生物,包括吲哚-3-乙酸、吲哚-3-醛等。这些物质可以作用于芳香烃受体(AHR),影响上皮屏障和黏膜免疫。
色氨酸代谢物促进肠屏障保护
拟杆菌属的脆弱拟杆菌(Bacteroides thetaiotaomicron)被认为具有利用膳食色氨酸产生吲哚类物质的能力。吲哚激活AHR后,可能进一步影响Nrf2相关抗氧化通路,并促进:
当屏障得到改善时,脂多糖、鞭毛蛋白、细菌细胞壁片段以及其他促炎代谢物就不容易进入肠壁深层,从而间接减少成纤维细胞、巨噬细胞和T细胞受到的刺激。
注:目前,这一方向的研究重点不是单纯增加色氨酸摄入,而是探索“富含色氨酸的饮食+能够稳定产生有益吲哚代谢物的菌株”是否能够形成更可靠的屏障保护效果。对于克罗恩病患者,饮食和补充剂仍应根据疾病活动、肠道狭窄和营养状况个体化调整。
从“菌名检测”走向“功能检测”
传统菌群检测通常回答的是:某个菌属增加了,另一个菌属减少了。但对于肠道纤维化而言,更关键的问题可能是:
因此,未来更有价值的检测可能不是单纯列出“有哪些菌”,而是把宏基因组、代谢组、炎症指标、影像学和内镜结果结合起来,判断微生物组的实际功能。
一份报告即使显示某些“有益菌”减少,也不能直接预测患者一定会发生狭窄;同样,某种代谢物升高也不能单独作为纤维化诊断依据。只有当代谢物变化与症状、炎症活动、影像学狭窄和组织表现相互印证时,才可能真正帮助临床决策。
关于肠道微生物组与纤维化的许多认识,来自细胞实验、动物模型、患者组织和血清标志物研究。每一类证据都像一块拼图,但它们的强度和局限不同。理解证据如何一步步建立,可以帮助我们既看到研究前景,也不被“实验室有效”误导成“临床已经成熟”。
遗传线索: NOD2揭示宿主识别细菌的机制
资料显示,NOD2变异可能影响细菌成分识别,并与Paneth细胞功能障碍相关。Paneth细胞分泌抗菌肽、维持上皮屏障;其功能异常可能改变肠道与微生物之间的距离及信号强度。Nature于2021年发表的研究进一步支持了NOD2与克罗恩病肠道纤维化之间的机制联系。
这一发现表明,疾病风险不仅取决于“有哪些菌”,还取决于宿主如何识别和处理它们。相同的微生物环境在不同遗传背景下,可能引发程度不同的反应。
抗微生物抗体:提示病程复杂,但不能单独诊断纤维化
研究发现,CBir1、OmpC和I2等抗微生物抗体可能与克罗恩病的复杂病程、狭窄或穿透表型及更高的手术风险相关,部分血清学变化甚至可能早于临床诊断出现。但需要明确的是,它们无法可靠地区分肠道纤维化与其他复杂疾病表现。
因此,这些指标应被视为风险线索,而非命运预测。检测结果异常可提示医生加强随访、进一步进行影像学评估或综合判断,但不能替代症状、内镜、影像和病理结果。患者也不应仅因一次异常检测,就认定自己必然需要手术。
细胞实验结果需谨慎外推至临床
将微生物成分加入培养的上皮细胞或成纤维细胞后,研究者可观察到NF-κB、TGF-β、ROS等信号变化。这类实验只能说明细胞能否响应某种刺激,无法确认患者体内是否存在相同浓度的刺激、刺激是否来自同一种细菌,或阻断该刺激能否带来临床获益。
研究指出,部分上皮细胞实验使用了永生化细胞,仍需通过原代细胞和体内研究进一步验证。明确实验局限,是保证科学可靠性的重要组成部分。
临床现实:炎症控制仍是基础
资料指出,肠道纤维化常导致狭窄,临床意义重大,而有效的抗纤维化疗法仍是未满足的需求。微生物组机制为超越传统免疫抑制提供了新思路,但许多靶点仍停留在细胞、动物或早期转化研究阶段。
对患者来说,这意味着不能因为微生物组研究出现新进展,就自行停用现有治疗或用未经验证的方法替代规范管理。现阶段最稳妥的策略仍是由消化科团队判断炎症活动、狭窄程度、营养状况和并发症风险;微生物组相关检测和干预,只有在明确目的、了解局限并与整体治疗计划协调时,才可能发挥更大价值。
纤维化并不只发生在克罗恩病患者肠道。它本质上是组织反复受损后,修复过程没有按时“刹车”:成纤维细胞和肌成纤维细胞持续活化,胶原等细胞外基质(ECM)过度沉积,原本柔软、有弹性的组织逐渐变厚、变硬、失去正常结构。长期进展可导致器官功能下降,甚至器官衰竭。
除肠道外,纤维化可累及几乎所有器官和组织,最常见、危害最大的包括以下几类。
肺
✔ 常见纤维化形式或相关疾病:
• 特发性肺纤维化(IPF);
• 尘肺;
• 部分间质性肺病;
• 系统性硬化症相关间质性肺病。
✔ 主要危害:
肺泡间隔增厚、肺组织变硬,气体交换受阻;出现进行性气短、干咳、活动耐量下降,严重时呼吸衰竭。
肝脏
✔ 常见纤维化形式或相关疾病:
• 慢性乙/丙型肝炎;
• 酒精相关肝病;
• 代谢功能障碍相关脂肪性肝炎(MASH)等所致肝纤维化。
✔ 主要危害:
肝脏结构被瘢痕组织重塑,进展后可形成肝硬化、门静脉高压、腹水、消化道出血、肝功能衰竭,并增加肝细胞癌风险。
心脏
✔ 常见纤维化形式或相关疾病:
• 高血压性心肌纤维化;
• 心肌梗死后瘢痕;
• 糖尿病或心肌病相关纤维化。
✔ 主要危害:
心肌变硬、舒张和收缩功能受损,导致心力衰竭;同时可干扰电信号传导,增加心律失常和猝死风险。
肾脏
✔ 常见纤维化形式或相关疾病:
• 肾小球硬化;
• 肾小管间质纤维化。
✔ 主要危害:
肾单位逐渐丢失,滤过能力下降,可出现蛋白尿、水肿、电解质紊乱和尿毒症;晚期可能需透析或肾移植。
其他
编辑
不同器官纤维化,为什么危害都很大?
不同部位表现不同,但核心危害相似:
(1)组织变硬、弹性下降
肺无法充分扩张,心脏无法舒张,肠道难以蠕动,皮肤和关节难以活动。
(2)正常结构被“瘢痕”取代
例如肝小叶、肾单位、肺泡和心肌结构被破坏后,即使炎症减轻,功能也未必能完全恢复。
(3)形成自我强化循环
纤维化组织越硬,机械张力越大,越容易进一步激活TGF-β等促纤维化信号;因此纤维化有时可在炎症相对平稳后仍继续进展。
(4)增加终末期器官衰竭风险
肺纤维化可发展为呼吸衰竭,肝纤维化可发展为肝硬化与肝衰竭,肾纤维化可发展为终末期肾病,心肌纤维化则与心力衰竭和恶性心律失常密切相关。
与肠道微生物群有什么联系?
肠道微生物群的影响并不局限于肠道。肠屏障受损、菌群失衡或微生物代谢异常时,细菌成分及代谢物可能进入门静脉或全身循环,影响远端器官的免疫、炎症和代谢环境。
✔ 注意:菌群改变通常是风险线索和潜在参与因素,而不是单一病因。肠道菌群检测可作为个体化风险评估和动态观察的补充,但是不能单独诊断某个器官是否纤维化,也不能替代影像、内镜、血液检查或病理评估。
当我们知道微生物组可能参与纤维化,下一步自然会问:能不能把它调回来?目前研究主要沿着四个方向展开:恢复有益的代谢功能,精准补充或移植微生物,针对特定病原菌及其毒力,直接阻断微生物与宿主之间的促纤维化信号。
它们都很有潜力,但距离成为稳定、普适的临床方案,仍然需要回答安全性、个体差异、持续时间和真实结局等问题。
恢复功能:纤维、益生菌与合生元
✔ 短链脂肪酸产生菌有助于减轻纤维化
研究发现,通过益生菌、膳食纤维或合生元补充短链脂肪酸产生菌群,可能帮助改善屏障和免疫环境;F. prausnitzii、Anaerotruncus和Lachnospiraceae_NK4A136等产短链脂肪酸相关类群被列为有前景的研究对象。
短链脂肪酸(SCFA)产生菌,如F. prausnitzii,在克罗恩病(CD)相关的菌群失调和纤维化表型中常显著减少;其及其代谢物可上调抗纤维化细胞因子(IL-10、IL-12),同时抑制Th17反应。
注:除了SCFAs,某些长链脂肪酸,如二十碳四烯酸,已显示出通过降低ECM基因表达和CD患者特异性类器官模型中的组织硬度而具有靶向抗纤维化效果。
这里的重点并不是寻找或追求一个“最强菌种”,而是尽可能恢复一组相互关联的肠道功能。理想状态下,肠道生态系统应具备处理膳食纤维、产生具有保护作用的代谢物、支持屏障完整性以及维持免疫耐受的能力。也就是说,关注的不只是某个菌是否增加,还包括整体菌群能否共同发挥这些功能,以及这些功能是否与患者的实际状态相匹配。
✔ 调控P2X7R轴重塑抗纤维化菌群生态
近期证据表明,P2X7受体(P2X7R)是连接菌群失调与纤维化的关键分子开关。激活P2X7R可诱导NLRP3炎症小体并增加活性氧生成,形成不利于Roseburia、Odoribacter等严格厌氧产丁酸菌生存的氧化环境;抑制或缺失P2X7R则能减轻氧化应激,恢复这些有益菌的生态位。
其中,Roseburia intestinalis可增强上皮屏障,并抑制IL-17、肿瘤生长因子M等促纤维化介质的分泌;Odoribacter splanchnicus则抑制Th17反应、促进Treg分化,其细胞外囊泡还能通过抑制NLRP3炎症小体进一步减轻黏膜损伤。因此,调控P2X7R/NLRP3轴以重塑抗纤维化微生物组,可能成为下一代治疗策略。
✔ 益生菌干预应注重个体化与安全性
不同患者在饮食耐受性、基础菌群组成和症状表现方面存在较大差异。因此,未来更可能采用分层设计,根据个体情况选择相应的饮食、益生菌或合生元策略,而不是让所有患者都使用完全相同的配方。即使某种组合在研究中显示出潜力,也不能简单推断其对每个人都具有相同效果。
在日常管理中,可以将饮食记录与症状记录结合起来,持续观察哪些食物在病情稳定期更容易耐受,哪些食物在症状加重时可能需要暂时调整。这样的记录有助于了解个人模式,但不等同于自行制定严格的长期饮食方案。
任何明显改变饮食结构,或长期使用益生菌、合生元及其他补充剂的决定,都应同时考虑肠道狭窄、营养不良和药物相互作用等问题,并与整体治疗安排保持协调。
粪菌移植:从“整体搬运”走向更精准的微生物组干预
粪便微生物移植常被探索用于恢复健康微生物,但疗效并不一致,该领域正向针对特定纤维生成通路的精确干预转变。
✔ 特定菌株精准靶向肠道抗纤维化治疗
最近的研究表明,口服给药F. prausnitzii或其细胞外囊泡通过优先诱导抗纤维化的M2b巨噬细胞极化而非促纤维化的M2a表型来缓解肠道纤维化。此外,Bacteroides thetaiotaomicron与F.prausnitzii的双重组合在恢复Th17/Treg平衡和刺激抗纤维化IL-10分泌方面显示出优于单药治疗的疗效。
B.thetaiotaomicron的治疗潜力源于其将膳食色氨酸代谢为吲哚的能力,吲哚是芳香烃受体(AHR)的配体。激活AHR-Nrf2轴通过上调紧密连接和粘蛋白基因增强上皮屏障,同时保护肠上皮细胞免受氧化应激和TNF诱导的细胞凋亡。此外,B.thetaiotaomicron衍生的代谢物抑制病原菌的生长。
未来肠道纤维化治疗应由传统粪菌移植转向精准微生物组干预。由于菌群定植受患者原有菌群、饮食、药物、炎症及免疫状态影响,且供体材料存在未知成分、安全性和标准化等问题,FMT难以实现稳定、可控的疗效。
更具前景的策略是采用经过筛选、定量和质量控制的功能组合,例如将富含色氨酸的饮食与B.thetaiotaomicron或吲哚衍生物结合,以强化肠黏膜屏障、抑制促纤维化病原体移位,并实现更具针对性的抗纤维化治疗。
针对AIEC驱动纤维生成的精准干预
✔ 通过分析患者的AIEC菌株进行个性化干预
粘附侵袭性大肠杆菌(AIEC)与克罗恩病相关的狭窄有关,患者的粘膜阳性率约在21%至62%之间。这种显著的患者间变异性和菌株异质性突显了AIEC作为克罗恩病中潜在精准医疗靶点的可能性。
在未来,针对患者特定的粪便或组织AIEC菌株进行分析,以识别促纤维化特征,可以实现个性化干预,例如阻止上皮细胞粘附、采用噬菌体疗法选择性消除特定患者的AIEC,或抑制促纤维化代谢物的合成。
✔ 精准靶向AIEC的抗纤维化策略
针对AIEC及其促纤维化作用,已有多种治疗策略正在探索。环丙沙星、利福昔明等抗生素的临床疗效有限;相比之下,短链烷基硼酸和细菌素等新型药物在临床前研究中可有效抑制AIEC生长与致病性。
噬菌体可识别细菌表面受体、注入遗传物质并裂解靶菌,因此个体化噬菌体鸡尾酒疗法有望选择性清除促纤维化AIEC。研究显示,含7种噬菌体的鸡尾酒可在体外清除多种AIEC菌株,并减轻小鼠结肠炎炎症;FimH抑制剂Sibofimloc通过阻断AIEC上皮黏附也显示出良好效果,但仍需进一步验证。
总体而言,精准微生物组干预有望控制AIEC阳性CD患者的纤维化。其临床常规应用仍需实现目标菌株的快速准确鉴定,并证实清除该菌株可改善炎症、狭窄及患者生活质量。
直接针对宿主信号:从TGF-β、TL1A到氧化应激
除了改变微生物本身,还可以阻断微生物信号进入宿主后的关键节点。研究方向包括TGF-β相关通路、TL1A/DR3、IL-33/ST2、IL-6/STAT3、NLRP3炎症小体、P2X7受体和氧化应激防御等。理论上,阻断这些通路可以减少成纤维细胞活化或改变免疫细胞状态。
✔ 精准调控抗纤维化信号平衡
研究证据提到,抑制TL1A或IL-33/ST2等信号在实验模型中可以减少纤维化,激活Nrf2等抗氧化防御也被视为潜在策略;但不同通路广泛参与免疫和组织稳态,靶向时需要平衡抗纤维化获益与感染、免疫抑制或其他副作用风险。
这也是为什么抗纤维化治疗不能只追求“越强越好”。肠道需要一定的免疫防御,也需要一定的修复能力。真正理想的治疗,是把失控的信号压回合理范围,而不是让肠壁失去所有反应能力。
未来可能是组合策略,而不是单一方案
克罗恩病纤维化的形成涉及微生物、屏障、免疫、脂肪组织、机械环境和遗传背景。只改变其中一层,可能不足以扭转已经形成的循环。未来的方案或许会根据病程阶段组合使用:在炎症活动期加强疾病控制,在屏障受损时减少异常微生物暴露,在特定菌株明确时进行选择性靶向,在组织已经变硬时针对机械和基质重塑。
但组合治疗也意味着更复杂的风险管理。每增加一种干预,就需要回答它是否真的必要、是否会与现有药物相互影响、如何监测效果、何时停止。患者真正需要的不是“越多越先进”,而是有明确目标、有证据支持、能够被监测和调整的个体化方案。
克罗恩病肠道纤维化,并不是简单的“炎症留下的疤痕”,而更像一场长期失衡的修复:反复的炎症、受损的肠道屏障、被激活的免疫细胞、不断沉积的细胞外基质,以及肠系膜脂肪和肠道微生物群的变化,共同推动肠壁逐渐增厚、变硬,最终形成狭窄。
这种复杂性可能令患者感到疲惫:症状反复,检查结果未必完全反映实际感受,治疗也难以立即解决所有问题。但复杂不等于无能为力。研究正从“炎症如何发生”进一步转向“组织为何硬化”“哪些微生物信号参与其中”以及“如何在维持正常生态的基础上进行干预”。这些更精准的问题,将推动治疗更贴近患者需求。
肠道微生物群让我们看到,纤维化的发生不只取决于“有没有炎症”,还与肠道如何识别微生物信号、屏障是否完整、哪些代谢物增加或减少密切相关。菌群失调可能通过激活成纤维细胞、放大TGF-β等促纤维化信号、影响免疫反应和“爬行脂肪”,使修复过程难以适时停止;而短链脂肪酸等有益代谢物及其产生菌,可能有助于维持屏障和免疫平衡。
未来更合理的路径,是以规范控制炎症为基础,结合症状、实验室指标、影像与内镜评估、营养管理和生活方式调整,并在合适情况下纳入肠道菌群等微生态监测信息,开展个体化、动态化的综合干预。理解并利用微生物组,不是寻找“万能答案”,而是让我们有机会更早识别风险、更精准地保护肠道,并尽可能阻止肠壁在反复损伤与修复中逐渐变硬。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
相关阅读:
真实案例 | 克罗恩病患者肠道菌群检测
肠道菌群:用于区分克罗恩病与非克罗恩回肠炎
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
肠道菌群失调与炎症性肠病的关联
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症性肠病中宿主与微生物群的相互作用
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
什么是肠道屏障,影响因素,监测评估以及如何治疗干预
主要参考文献
Kim JH, Choi YJ, Yoo JH. Gut microbiome: a key driver and therapeutic target of intestinal fibrosis in Crohn’s disease. Intest Res. 2026 Aug 10.
Rieder F, Mukherjee PK, Massey WJ, Wang Y, Fiocchi C. Fibrosis in IBD: from pathogenesis to therapeutic targets. Gut. 2024 Apr 5;73(5):854-866.
Fousekis FS, Mpakogiannis K, Mastorogianni IN, Lianos GD, Christodoulou DK, Katsanos KH. Intestinal Fibrosis in Crohn’s Disease: Pathophysiology, Diagnosis, and New Therapeutic Targets. J Clin Med. 2025 Jun 8;14(12):4060.
Rieder F, Fiocchi C, Rogler G. Mechanisms, Management, and Treatment of Fibrosis in Patients With Inflammatory Bowel Diseases. Gastroenterology. 2017 Feb;152(2):340-350.e6.
Lin X, Wang Y, Liu Z, Lin S, Tan J, He J, Hu F, Wu X, Ghosh S, Chen M, Liu F, Mao R. Intestinal strictures in Crohn’s disease: a 2021 update. Ther Adv Gastroenterol. 2022 Jun 21;15:17562848221104951.
Watanabe D, Kamada N. Contribution of the Gut Microbiota to Intestinal Fibrosis in Crohn’s Disease. Front Med (Lausanne). 2022 Feb 7;9:826240.
Kim HY, Song MK, Gho YS, Kim HH, Choi BK. Extracellular vesicles derived from the periodontal pathogen Filifactor alocis induce systemic bone loss through Toll-like receptor 2. J Extracell Vesicles. 2021 Oct;10(12):e12157.
Yoo JH, Holubar S, Rieder F. Fibrostenotic strictures in Crohn’s disease. Intest Res. 2020 Oct;18(4):379-401.
谷禾健康
在人类肠道微生物组这个复杂的生态系统中,大多数物种的功能仍属未知。然而,有一株细菌因其在药物代谢、免疫调控和疾病关联中的突出作用,正从”默默无闻”走向”舞台中央”——它就是迟缓埃格特菌(Eggerthella lenta)。
迟缓埃格特菌(Eggerthella lenta)是一种革兰氏阳性、无芽孢、专性厌氧的放线菌,广泛存在于人体肠道中。它是少见的无糖代谢专性厌氧菌,代谢终产物乙酸盐作为碳源,同时主要依赖精氨酸脱亚胺酶途径来产生 ATP 能量。
长期以来,该菌因其能够使心脏药物地高辛失活而闻名。不仅如此,多数研究逐步证实在治疗帕金森病的药物左旋多巴的代谢链中,E.lenta 同样扮演了关键角色,能利用多巴胺脱羟酶(Dadh) 将粪肠球菌产生的多巴胺进一步转化为间酪胺。
这些发现表明,它就像是药物在体内命运的一个“隐形开关”然而,近十年来的研究揭示了E.lenta远超药物代谢的丰富生物学图景:它拥有独特的类固醇代谢能力、多样的植物多酚转化途径、复杂的菌株水平变异,并通过多种代谢产物和细胞组分深度调控宿主免疫系统。
E. lenta在炎症性肠病、类风湿性关节炎、多发性硬化、2型糖尿病、心血管疾病及多种肿瘤中呈现丰度变化,且能在特定条件下“揭竿而起”,成为导致高死亡率血流感染的“机会主义者”。与此同时,该菌也在百岁老人肠道中富集,具有抗菌、抗肿瘤等潜在有益作用。这种“亦敌亦友”的特性使其成为微生物组研究中最引人注目的物种之一。
编辑
近日, 美国加州大学Peter J. Turnbaugh 教授团队在《Nature Reviews Microbiology》(IF=104.6)发表综述,系统汇总迟缓埃格特菌代谢、免疫调控、菌株多样性及微生物编辑干预方案。本文以该综述为主要参考,探讨这一广泛存在却长期被忽视的肠道细菌,如何通过独特的代谢网络影响药物疗效、膳食成分转化及多种慢性疾病进程,并介绍针对该菌的精准干预方向,包括饮食调节、优化药物共给药、噬菌体治疗和 CRISPR 基因组编辑等。
▸ 迟缓埃格特菌的研究历史
迟缓埃格特菌(Eggerthella lenta)的研究历史可追溯至1935年,Eggerth首次从人类粪便中分离出这种革兰氏阳性、无芽孢的厌氧杆菌。
1938年,Prevot将其命名为迟缓真细菌(Eubacterium lentum),后于1999年基于系统发育证据重新分类至新建的埃格特菌属(Eggerthella),定名为Eggerthella lenta。
在随后的数十年中,该菌主要被视为一种低丰度的肠道共生菌,偶尔在菌血症等感染病例中被报道。直到2013年,Turnbaugh实验室在Science上发表里程碑式研究,证明E. lenta能够代谢并灭活强心苷类药物地高辛,且这一能力具有菌株特异性,这才真正点燃了学术界对该菌的研究热情。
此后十余年,随着高通量测序、比较基因组学、代谢组学、无菌动物模型及遗传操作工具的发展,E.lenta 的生物学特征得到迅速揭示。研究发现,该菌不仅含有参与强心苷还原的 Cgr 操纵子,还具备完整的类固醇代谢酶系,包括羟基类固醇脱氢酶(HSDH)、7α-脱水酶和 21-脱羟酶等,可转化胆汁酸和性激素。
2020—2022 年,多项研究阐明了 E. lenta 通过 Cgr2 调控 Th17 细胞活化、促进肠道炎症的机制,并发现其胆汁酸代谢产物可双向调节 T 细胞分化。2022 年,首个针对 E. lenta 的 CRISPR-Cas 基因组编辑工具问世,推动相关研究从描述性关联迈向机制性因果验证。2024—2026 年,研究进一步揭示了该菌参与糖皮质激素向孕激素转化、产生促炎脂质分子,以及其对胰腺癌可能具有的保护作用。
▸ E. lenta值得研究的原因
迟缓埃格特菌(Eggerthella lenta)之所以值得深入研究,至少有以下几方面原因:
• 第一:它在人类肠道中高度流行(约80%以上的健康成人携带),但丰度通常较低(<0.1%),这种”高流行、低丰度”的模式提示其可能发挥着与其数量不成比例的重要调控作用;
• 第二,全身的“机会主义者”:传统上,迟缓埃格特菌感染多与腹腔内感染(如阑尾炎、肠穿孔、肝脓肿)相关,这与其肠道定植的生态位相符。
最新的病例报道:一位78岁的男性糖尿病患者,在Fournier坏疽(一种会阴、生殖器区域的坏死性筋膜炎)手术后出现了脓毒症休克,血培养最终揪出了元凶:迟缓埃格特菌。这个病例警示我们,该菌的感染谱可能比我们想象的更广。
迟缓埃格特菌感染的高危人群:
• 第三:该菌的泛基因组高度开放,菌株间变异显著,不同菌株在药物代谢、免疫激活等方面可能表现出截然相反的表型,这对微生物组研究中”物种水平”的分析范式提出了挑战;
• 第四:E. lenta与数十种疾病存在关联,涵盖自身免疫病、代谢性疾病、心血管疾病、肿瘤和神经系统疾病,是连接肠道菌群与全身健康的重要节点;
• 第五:,该菌已具备遗传操作系统,是微生物组编辑和精准医学的理想靶点。
分类地位
E. lenta在分类学上隶属于:
埃格特菌科包含多个属,除Eggerthella外,还包括Gordonibacter、Slackia、Paraeggerthella、Adlercreutzia、Enterorhabdus等,这些菌在系统发育上关系密切,且普遍具有转化多酚和类固醇的能力。E. lenta的模式菌株为DSM 2243ᵀ(等同ATCC 25559ᵀ),于1935年由Eggerth分离。
形态和培养特征
E. lenta为革兰氏阳性杆菌(但在某些生长条件下或老龄培养物中可呈革兰氏染色不定),大小约为0.2-0.5 μm × 0.8-2.0 μm,不形成芽孢,不运动。
在厌氧条件下生长良好,最适生长温度为37°C。在血琼脂平板上培养48小时后,可形成直径0.5-2.0 mm的圆形、凸起、光滑、不透明的白色至灰色菌落。部分菌株可产生α溶血。
• 精氨酸是调控该菌免疫激活能力的重要物质
该菌生化反应不活泼,不发酵大多数糖类,不产生触酶和氧化酶。其生长严重依赖精氨酸,精氨酸通过精氨酸脱亚胺酶(arginine deiminase, ADI)途径代谢,产生鸟氨酸、氨和ATP。
早期研究表明,精氨酸是E. lenta的生长限制因子,在富含精氨酸的环境中生长显著增强。这一代谢特征后来被证明是调控该菌免疫激活能力的关键靶点。
流行率与人体分布
• 流行率较高但相对丰度较低
E. lenta是人类肠道中流行率最高的细菌之一。对超过168000份样本的整合分析显示,该菌在全球人群中的流行率超过80%。
然而,其相对丰度通常很低,在大多数健康成人中低于肠道菌群的0.1%。这种”高流行、低丰度”的分布模式提示E. lenta可能是一种”关键物种”,通过代谢活性而非数量优势来影响微生态和宿主生理。
• E. lenta主要定殖于人体结肠
E. lenta主要定殖于人类结肠,但在回肠中也可检出。除肠道外,该菌在口腔、女性生殖道中偶有报告。
值得注意的是,尽管该菌在人类肠道中高度流行,但在其他哺乳动物中并不常见。这种“人类特异性”定殖的机制尚不清楚,可能与宿主饮食、肠道生理环境或微生物竞争有关。
埃格特菌科的其他成员则在多种脊椎动物中广泛分布,提示E. lenta可能在进化过程中发生了宿主适应。
基因组特征
• 基因组基本特征
E. lenta模式菌株DSM 2243ᵀ的基因组大小约为3.1 Mb,GC含量约为64%,编码约2,800个蛋白质编码基因。随着菌株分离和测序工作的推进,目前已有数十个E. lenta基因组被测定和比较分析。
E. lenta的泛基因组呈现高度开放的特征。在2020年构建了包含24个菌株的比较基因组学工具箱,发现菌株间存在大量可变基因。最新的研究通过分析更多基因组,将E. lenta划分为两个系统发育亚群,其中一个亚群将越来越大比例的基因组用于移动元件防御,这反映了噬菌体和其他肠道移动元件对该菌施加的强烈选择压力。
• CRISPR-Cas系统与防御机制
E. lenta编码I-C型CRISPR-Cas3系统,这一内源性免疫系统后来被开发为基因组编辑工具。生物信息学分析从CRISPR间隔区中鉴定出13种不同的噬菌体,其中多种频繁受到CRISPR-Cas系统的靶向,表明噬菌体是E. lenta在肠道环境中的主要威胁之一。
除CRISPR系统外,E. lenta的泛基因组至少包含22类不同的防御系统,其中大多数具有菌株可变性。这些防御系统包括限制修饰系统、流产感染系统等,构成了多层防护网络。
• 拥有大量氧化还原酶
E. lenta的代谢多样性很大程度上依赖于其编码的大量氧化还原酶。比较基因组学分析显示,该菌编码多达651个氧化还原相关基因,约占其基因组的四分之一。这些酶利用铁硫簇、黄素、钼喋呤等辅因子,催化从类固醇还原到多酚脱羟基的各种反应。
厌氧呼吸与电子受体利用
E. lenta虽然不发酵糖类,但拥有强大的厌氧呼吸能力。它能够利用多种电子受体进行能量代谢,包括:
• 精氨酸:通过ADI途径,精氨酸不仅作为碳氮源,还可通过精氨酸-鸟氨酸反向转运产生质子动力。
• 有机酸:如乳酸,通过乳酸消旋酶和乳酸利用酶系进行代谢。
• 衣康酸(itaconate):这是一种宿主来源的免疫代谢物,由活化的巨噬细胞产生,具有抗菌活性。E. lenta能够利用衣康酸作为呼吸底物,这一能力由三个基因座(ita1、ita2、ita3)介导,且在该菌中高度保守。
在肺炎小鼠模型中,E. lenta在肺部的丰度与衣康酸浓度相关,提示该菌能够利用宿主炎症代谢物在炎症部位生存。
• 羟基肉桂酸类:如绿原酸、新绿原酸等,通过脱羟基反应转化为相应的儿茶酚衍生物。这种代谢能力可能有助于多酚类化合物的利用,并影响宿主的抗氧化和抗炎反应。
强心苷还原酶系统与地高辛代谢
E. lenta最著名的代谢能力是对强心苷类药物的还原灭活。强心苷是一类结构中含有甾体母核和不饱和内酯环的化合物,包括临床上广泛使用的地高辛(digoxin)和洋地黄毒苷(digitoxin),用于治疗心力衰竭和心房颤动。
2013 年发表于《Science》的研究首次证实,E.lenta 可将地高辛还原为无活性的二氢地高辛,但这一能力具有菌株特异性,仅部分菌株具备该活性。
地高辛治疗窗极窄,有效血药浓度仅为 0.5–2.0 ng/mL;微生物介导的药物灭活可能导致疗效不足。抗生素可暂时改变 E. lenta 的丰度和活性,进而影响地高辛血药浓度。2024 年一项研究进一步发现,肠道放线菌(包括 E. lenta)分泌的 P-糖蛋白 ATP 酶抑制剂可促进药物吸收,表明微生物不仅能直接代谢药物,还可通过调控宿主转运蛋白影响药物作用。
胆汁酸代谢
E. lenta 编码一套在肠道细菌中较为罕见的胆汁酸代谢酶系统。
• E. lenta通过胆汁酸代谢调控肠道免疫
其产生的胆汁酸代谢物不仅参与胆汁酸转化,还可调控宿主免疫反应:异脱氧胆酸(isoDCA)通过法尼酯 X 受体(FXR)影响树突状细胞,并促进调节性 T 细胞(Treg)分化;异石胆酸(isoLCA)和 3-氧代石胆酸(3-oxoLCA)可直接作用于 RORγt,抑制辅助性 T 细胞 17(Th17)分化。isoLCA 进一步转化生成的 isoalloLCA 则可增强线粒体活性氧产生、促进 FOXP3 表达,从而有利于 Treg 形成。
百岁老人肠道中 isoLCA 和 isoalloLCA 水平通常较高。这些代谢物既有助于维持免疫平衡,也能有效抑制艰难梭菌和耐万古霉素肠球菌,可能是其抵御肠道感染的重要因素之一。
植物多酚代谢
E. lenta 在植物多酚的微生物转化中发挥关键作用,尤其参与木脂素和鞣花单宁代谢,并可转化四大类结构各异的多酚化合物。
编辑
• E. lenta转化多酚释放健康潜能
E. lenta能够帮助人体转化多种植物多酚,尤其擅长分解和改造木脂素、鞣花单宁等成分。这些物质广泛存在于亚麻籽、芝麻、全谷物、浆果和核桃等食物中。
E. lenta编码的儿茶酚-O-脱甲基酶(如Demethylenateuteinase A, DmaA)负责将罗汉松脂素等木脂素O-脱甲基化为肠木脂素的前体。肠木脂素(肠二醇和肠内酯)具有弱雌激素活性、抗氧化和抗肿瘤特性。
E. lenta和近缘菌参与将鞣花单宁(存在于浆果、核桃等食物中)转化为尿石素的过程。2025年,研究发现了对映互补的肠道细菌酶,能够以不同立体化学方式代谢膳食多酚。
这表明,膳食和补充剂成分经 E. lenta 等肠道菌代谢后可转化为多种新化合物,其中部分具有弱雌激素、抗氧化和抗炎作用,进而影响人体健康。
氨基酸代谢
E. lenta 的生长和代谢高度依赖氨基酸,尤其是精氨酸。其精氨酸脱亚胺酶(ADI)途径可将精氨酸转化为瓜氨酸和氨,随后生成鸟氨酸和 ATP,从而提供能量、缓冲酸性环境,并为多胺合成提供底物。
此外,E. lenta 还可通过 Stickland 型反应代谢脯氨酸、亮氨酸和苯丙氨酸等多种氨基酸。2025 年研究表明,这类氨基酸发酵在复杂肠道菌群中的作用比此前认识更广泛。
E. lenta 的氨基酸代谢也与宿主免疫直接相关。Alexander 等发现,高精氨酸饮食可抑制 Cgr2 酶活性,阻断 E. lenta 激活 Th17 细胞,从而缓解小鼠结肠炎,为通过膳食氨基酸调控肠道免疫提供了新思路。
强大的类固醇激素代谢
E. lenta具有强大的类固醇转化能力,这在肠道细菌中极为罕见。除前述胆汁酸转化外,该菌还能:将皮质酮等糖皮质激素转化为孕酮等孕激素。这一转化需要与大肠杆菌共培养,利用其产生的氢气。
早期研究表明,E. lenta能够转化多种内源性和合成的性激素,这些激素经历肠肝循环。这一能力对生殖系统疾病的潜在影响正在受到关注。
其他药物和外源物代谢
除地高辛外,E. lenta还参与多种药物和外源化合物的代谢:
• 左旋多巴:在治疗帕金森病的药物左旋多巴的代谢链中,E. lenta 同样扮演了关键角色,能利用多巴胺脱羟酶(Dadh) 将粪肠球菌产生的多巴胺进一步转化为间酪胺。
• 甲氨蝶呤:甲氨蝶呤是一种常用的免疫抑制剂和抗肿瘤药物。甲氨蝶呤影响E. lenta等多种肠道细菌的保守代谢通路,导致宿主免疫激活降低。
• 辛伐他汀:2024年的研究发现,辛伐他汀可诱导E. lenta细胞表面基因的表达,提示药物-微生物互作不仅限于直接代谢。
• 咪唑丙酸:E. lenta参与组氨酸代谢产生咪唑丙酸的过程,该代谢物在2型糖尿病患者中升高,可通过mTORC1通路损害胰岛素信号传导。2025年的研究进一步证实咪唑丙酸是动脉粥样硬化的驱动因子和治疗靶点,并可调节下丘脑活动和应激相关行为。
微生物间互作
E. lenta在肠道中并非孤立存在,而是与其他微生物形成复杂的代谢互作网络。例如:
• 与大肠杆菌的共代谢:E. lenta的21-脱羟酶活性需要与大肠杆菌共培养,大肠杆菌产生的氢气为该反应提供了必要的还原力。这一发现强调了微生物互作在类固醇代谢中的关键作用。
• 木脂素转化的分工协作:在将植物木脂素(如罗汉松脂素)转化为肠木脂素(肠二醇和肠内酯)的过程中,E. lenta负责O-脱甲基化步骤,而其他肠道细菌(如Gordonibacter、Lactonifactor等)参与后续的脱羟基和环化反应。
• 苯乳酸(PLA)对金黄色葡萄球菌的抑制:E.lenta和其他肠道细菌通过Dao酶将饮食中的3,4-二羟基苯乳酸(DOPL)转化为苯乳酸(PLA),后者在体外和体内均能抑制金黄色葡萄球菌的生长和毒力。
• 合成群落中的抗病原菌作用:在艰难梭菌感染模型中,包含E. lenta的合成群落能够抑制艰难梭菌的生长,这与其产生的次级胆汁酸(如DCA)有关。
与免疫系统的相互作用
E. lenta 对宿主免疫的调控是近年来的研究热点。其通过代谢产物和细胞组分调节 T 细胞、B 细胞、树突状细胞及中性粒细胞等多类免疫细胞。
• Th17细胞激活:Cgr2-RORγt通路
Th17细胞是一类表达转录因子RORγt(视黄酸相关孤儿受体γt)并分泌IL-17A的CD4⁺辅助性T细胞,在黏膜防御和自身免疫病中发挥关键作用。2022年在Cell Host & Microbe上发表的研究揭示了E.lenta激活Th17细胞的分子机制:
编辑
这一发现的重要意义在于:它首次证明了一种肠道细菌的单个代谢酶可以直接调控宿主的T细胞分化和自身免疫进程,且该酶的活性可以通过膳食营养(精氨酸)进行精准调控。Cgr2由此成为连接微生物代谢、饮食和自身免疫性疾病的关键分子节点。
E. lenta代谢产物及细胞组分对宿主免疫功能的影响
编辑
• 胆汁酸对T细胞的双向调节
与Cgr2的促炎作用不同,E. lenta产生的胆汁酸代谢产物对T细胞具有抗炎和促炎的双重调节作用,这些看似矛盾的效应反映了E. lenta免疫调节的复杂性:同一菌株可以同时产生促炎和抗炎的代谢产物,其净效应取决于菌株的基因组成、代谢状态、微环境和宿主背景。
• B细胞与IgA应答影响肠道免疫
E. lenta 与 B 细胞的互作在多发性硬化(MS)中备受关注。MS 患者粪便中,E. lenta 是 IgA 包被比例最高的细菌之一,提示其可能被黏膜免疫系统识别为潜在致病原。
活动性脑炎症期间,IgA⁺ B 细胞增多并聚集于炎症病灶,可穿过血脑屏障。部分由脑脊液 IgA⁺ B 细胞克隆获得的抗体能够结合 E. lenta,且对其结合能力强于对宿主抗原,提示 E. lenta 特异性 B 细胞可能由肠道迁移至中枢神经系统并参与 MS 炎症。
E. lenta 这种肠道细菌可能通过两种方式影响炎症和免疫疾病:一方面,它参与生成一种叫作 TUDCA 的物质,TUDCA 能降低中性粒细胞的过度活跃,从而可能帮助缓解炎症;另一方面,E. lenta 某些蛋白与人体关节软骨中的 II 型胶原很相似,免疫系统可能因此“认错对象”,在攻击细菌时也误伤自身关节组织。这种分子模拟可能增强炎症信号、减少调节免疫反应的 Treg 细胞,并促进自身抗体产生,从而增加类风湿性关节炎发生或加重的风险。这说明E. lenta 具有“双重免疫调控作用。
迟缓埃格特菌(Eggerthella lenta)与多种疾病存在关联,这些关联的强度和证据级别各不相同。
1
炎症性肠病(IBD)
证据最充分
IBD(包括克罗恩病和溃疡性结肠炎)是E. lenta疾病关联研究中证据最充分的领域。
• 炎症性肠病患者中E. lenta丰度升高
多项宏基因组学研究一致显示,E. lenta在IBD患者粪便中显著富集。更精细的分析表明,IBD患者中富集的是特定的E. lenta菌株谱系,而非简单的物种水平丰度增加。表达cgr2的菌株与疾病严重程度的相关性尤为显著。
• 补充精氨酸可能改善结肠炎
膳食精氨酸补充能够抑制相关菌株的促 Th17 代谢活性,并缓解小鼠结肠炎,提示饮食—菌群—免疫轴可能成为 IBD 干预的研究方向。
需要指出的是,E. lenta在IBD中的富集也可能是疾病状态的结果而非原因。IBD患者肠道中精氨酸可用性增加、氧化还原环境改变、IgA产生增多等因素可能为E. lenta提供了竞争优势。
因此,E. lenta在IBD中可能扮演”加速器”而非”启动器”的角色。
2
类风湿性关节炎(RA)
证据来自多项独立研究
类风湿性关节炎(RA)是一种以关节滑膜炎和自身抗体产生为特征的自身免疫病。E. lenta在RA患者肠道中富集的证据来自多项独立研究。在动物模型中,E. lenta加重了胶原诱导的关节炎,增加了促炎细胞因子和类风湿因子水平。
• E. lenta促进类风湿关节炎的机制
机制上,E. lenta可能通过两条途径促进RA:一是Cgr2介导的Th17激活(Th17在RA发病中起核心作用);二是II型胶原模拟蛋白诱导的抗原特异性自身免疫。这两条途径可能协同作用,共同驱动关节炎症。
3
多发性硬化(MS)
证据强度一般
• E. lenta在多发性硬化患者中富集
多发性硬化(MS)是一种中枢神经系统脱髓鞘疾病。多项研究报告E. lenta在MS患者中富集。最引人注目的发现是E. lenta特异性IgA⁺ B细胞能够从肠道迁移至中枢神经系统,参与活动性病灶的炎症反应,这一发现为“肠-脑轴”在MS中的作用提供了具体的细胞和分子机制。
4
其他自身免疫性疾病
• 系统性红斑狼疮(SLE):未治疗的SLE患者肠道中E. lenta富集,且与自身免疫和促炎特征相关。
• 格雷夫斯病:患者肠道菌群组成和基因改变中,E. lenta被鉴定为特异性诊断生物标志物。
• 强直性脊柱炎和脊柱关节炎:E. lenta在患者中富集,但因果关系尚未建立。
• 白塞氏葡萄膜炎:报告了E. lenta的富集。
• 乳糜泻:仅治疗患者中显示富集,需排除治疗混杂因素。
• IgG4相关疾病和系统性硬化症:经模型调整后仍显示E. lenta富集。
5
代谢性疾病
• 2型糖尿病(T2D):E. lenta在T2D患者中富集。有研究通过纳入初治患者和糖尿病前期对照,部分排除了二甲双胍治疗的混杂影响。
机制上,E. lenta 可产生咪唑丙酸,该代谢物通过 mTORC1 损害胰岛素信号,并影响动脉粥样硬化和下丘脑功能。
• 终末期肾病:E. lenta在患者中富集,且动物实验支持其致病作用。
6
心血管疾病
• 动脉粥样硬化:E. lenta相关的咪唑丙酸被证明是动脉粥样硬化的驱动因子和治疗靶点。
• 急性冠脉综合征:未治疗患者中E. lenta富集。
• 心力衰竭:经模型调整后仍显示富集。
考虑到地高辛是治疗心衰和房颤的常用药物,而E.lenta能够灭活地高辛,该菌在心血管疾病中的作用具有双重意义:它既可能通过炎症代谢物促进心血管疾病,又可能直接影响心血管药物的疗效。
7
肿瘤
E. lenta与肿瘤的关系呈现复杂的双向模式:
• 胰腺癌:孟德尔随机化分析和小鼠实验均支持E.lenta对胰腺癌的保护作用,其机制涉及肿瘤浸润CD8⁺ T细胞和自然杀伤T细胞的增加。
• 结直肠腺瘤和息肉:E. lenta在腺瘤性息肉患者中减少,但在结直肠癌中的关联结果不一致。在粪便免疫化学试验阳性的人群中,E. lenta被报告为减少。
• 肺腺癌:在初治患者中富集。
这些结果提示,E. lenta在不同肿瘤类型和不同疾病阶段中可能扮演不同角色,从保护因子到风险因子都有可能。
8
炎症性肠病(IBD)
• 阿尔茨海默病:E. lenta在患者中富集。
• 重度抑郁症:报告了富集。
• 精神分裂症:仅在抗精神病药物治疗后富集,提示可能是药物效应而非疾病本身的特征。
• 慢性疲劳综合征/肌痛性脑脊髓炎:关联结果不一致,有报告减少,也有报告富集。
咪唑丙酸对下丘脑活动和应激相关行为的调节,以及E. lenta特异性B细胞向中枢神经系统的迁移,为理解”肠-脑轴”提供了新机制。
9
菌血症与机会性感染
尽管E. lenta通常被视为肠道共生菌,但在免疫功能低下、胃肠道屏障受损或存在腹腔感染灶的患者中,该菌可引起菌血症。
研究系统分析了 E. lenta 菌血症的临床和微生物学特征,发现其常与胃肠道恶性肿瘤、腹腔手术及憩室炎相关,且多为多微生物感染。该菌通常对甲硝唑、碳青霉烯类和氯霉素敏感,但对万古霉素和氨基糖苷类的敏感性差异较大。
潜在有益作用
与上述疾病关联形成对比的是,E. lenta也有许多的健康保护作用:
• 抗菌防御:E. lenta产生的DCA抑制艰难梭菌生长,isoLCA/isoalloLCA抑制艰难梭菌和耐万古霉素肠球菌,PLA抑制金黄色葡萄球菌。
• 抗病毒/抗真菌免疫:特定菌株激活Th17细胞,这可能增强对病毒和真菌感染的黏膜防御。
• 抗炎平衡:3-oxoLCA/isoLCA抑制Th17,isoDCA/isoalloLCA促进Treg,这些抗炎代谢产物可能帮助维持肠道免疫稳态。
• 长寿相关:百岁老人肠道中E. lenta产生的isoLCA和isoalloLCA水平升高,与抗菌防御和健康长寿相关。
▸ 饮食干预
饮食是调控肠道菌群最安全、最可行的手段。针对E. lenta的饮食干预策略包括:
①精氨酸补充
高精氨酸饮食(3% Arg)可抑制 Cgr2 活性,阻断 cgr2⁺ E. lenta 激活 Th17 细胞及加重结肠炎。
精氨酸经精氨酸脱亚胺酶途径代谢,高浓度可能通过改变细胞内氧化还原状态或竞争性结合 Cgr2 活性位点抑制其功能。需注意,精氨酸也是 E. lenta 的生长限制因子,过量摄入或可促进其增殖,整体效应仍待进一步研究。
② 多酚饮食
摄入富含木脂素(亚麻籽、芝麻、全谷物)、鞣花单宁(浆果、核桃)和羟基肉桂酸(咖啡、水果、全谷物)的食物,可以为E. lenta提供代谢底物,促进肠木脂素、尿石素和PLA等有益代谢产物的产生。
然而,由于E. lenta菌株的代谢能力存在个体差异,“精准营养”需要考虑个体的菌群组成。
③ 膳食纤维
虽然E. lenta不直接发酵复杂多糖,但膳食纤维通过改变肠道整体环境(pH、短链脂肪酸、微生物互作)间接影响E. lenta的丰度和活性。
④ 饮食模式
西方饮食(高脂肪、高蛋白、低纤维)与E. lenta丰度增加相关,而地中海饮食等富含植物性食物的饮食模式可能促进该菌的有益代谢活性。
▸ 药物共给药与剂量调整
① 地高辛与抗生素
当地高辛与抗生素合用时,E. lenta被抑制可能导致地高辛血药浓度升高和毒性风险增加。反之,携带cgr2⁺菌株的患者可能需要更高剂量的地高辛。临床建议在使用地高辛前检测E. lenta cgr2状态,并在抗生素治疗期间加强血药浓度监测。
② Cgr2抑制剂
基于Cgr2的酶学特征和结构,开发特异性抑制剂可能成为治疗cgr2⁺ E. lenta相关IBD和RA的新策略。精氨酸本身可作为天然抑制剂,但更强效和特异的小分子抑制剂有待开发。
③ P-糖蛋白调控
肠道放线菌分泌的P-糖蛋白ATP酶抑制剂可促进药物吸收,这一发现提示可以通过调控微生物来优化口服药物的生物利用度。
▸ 益生菌与工程菌
• 有益菌株的筛选:部分E. lenta菌株(如不表达cgr2但产生抗炎胆汁酸的菌株)可能作为下一代益生菌。然而,由于该菌的厌氧特性和潜在的机会性感染风险,安全评估需极为谨慎。
• 工程化E. lenta:2022年开发的CRISPR-Cas遗传工具使得工程化E. lenta成为可能。未来可以设计具有增强抗炎代谢产物产生、缺失致病基因(如cgr2)或携带治疗性分子的工程菌株。
• 合成菌群:构建包含E. lenta和其他协作菌的合成群落,用于特定代谢功能的重建(如木脂素转化或艰难梭菌抗性)。
▸ 噬菌体治疗
• 烈性噬菌体:从废水中分离的E. lenta噬菌体以及通过生物信息学预测的噬菌体为靶向清除特定致病菌株提供了可能。噬菌体治疗具有高度物种甚至菌株特异性,不会像抗生素那样破坏整个菌群。
• 工程化噬菌体:利用原噬菌体元件工程化改造的烈性噬菌体可用于递送CRISPR-Cas系统或其他治疗性载荷,实现精确的基因敲除或代谢调控。
然而,E. lenta强大的CRISPR-Cas防御系统和其他防御机制是噬菌体治疗面临的主要挑战。需要筛选能够逃避宿主防御的噬菌体,或开发联合策略来克服细菌耐药。
目前,DNA递送至肠道厌氧菌仍是技术瓶颈,但噬菌体和接合质粒的研究进展正在逐步克服这一障碍。
▸ 粪菌移植(FMT)的考量
在粪菌移植(FMT)实践中,供体和受体的E. lenta菌株类型可能影响移植效果。例如,向IBD患者移植不携带cgr2的E. lenta菌株可能有益,而移植cgr2⁺菌株则可能有害。未来的FMT可能需要对供体进行菌株水平的筛选。
主要参考文献
Rock R, Zhang S, Noecker C, et al. Eggerthella lenta: metabolism, pathogenesis and therapeutic implications[J]. Nature Reviews Microbiology, 2026: 1-14
Eggerth AH. The Gram-positive non-spore-bearing anaerobic bacilli of human feces. J Bacteriol. 1935;30(3):277-299.
Moore WEC, Cato EP, Holdeman LV. Eubacterium lentum (Eggerth) Prevot 1938: emendation of description and designation of the neotype strain. Int J Syst Bacteriol. 1971;21:299-309.
Noecker C, et al. Systems biology elucidates the distinctive metabolic niche filled by the human gut microbe Eggerthella lenta. PLoS Biol. 2023;21:e3002125.
Kageyama A, Benno Y, Nakase T. Phylogenetic evidence for the transfer of Eubacterium lentum to the genus Eggerthella lenta gen. nov., comb. nov. Int J Syst Bacteriol. 1999;49:1725-1732.
Gardiner BJ, et al. Clinical and microbiological characteristics of Eggerthella lenta bacteremia. J Clin Microbiol. 2015;53:626-635.
Bisanz JE, et al. A genomic toolkit for the mechanistic dissection of intractable human gut bacteria. Cell Host Microbe. 2020;27:1001-1013.e9.
Koppel N, Bisanz JE, Pandelia ME, Turnbaugh PJ, Balskus EP. Discovery and characterization of a prevalent human gut bacterial enzyme sufficient for the inactivation of a family of plant toxins. eLife. 2018;7:e33953.
Haiser HJ, et al. Predicting and manipulating cardiac drug inactivation by the human gut bacterium Eggerthella lenta. Science. 2013;341:295-298.
Parte A, et al. Bergey’s Manual of Systematic Bacteriology: Volume 5: The Actinobacteria. Springer; 2019.
Sperry JF, Wilkins TD. Arginine, a growth-limiting factor for Eubacterium lentum. J Bacteriol. 1976;127:780-784.
Liu Y, et al. Decoding the role of the arginine dihydrolase pathway in shaping human gut community assembly and health-relevant metabolites. Cell Syst. 2025;16:101292.
Reese AT, et al. Microbial nitrogen limitation in the mammalian large intestine. Nat Microbiol. 2018;3:1441-1450.
Little AS, et al. Dietary- and host-derived metabolites are used by diverse gut bacteria for anaerobic respiration. Nat Microbiol. 2024;9:55-69.
Koh A, et al. Microbially produced imidazole propionate impairs insulin signaling through mTORC1. Cell. 2018;175:947-961.e17.
Mastrangelo A, et al. Imidazole propionate is a driver and therapeutic target in atherosclerosis. Nature. 2025;645:254-261.
Agirman G, et al. The microbial metabolite imidazole propionate modulates hypothalamic activity and stress-induced behaviors. Cell Host Microbe. 2025;33:2030-2042.e9.
Dong X, et al. Genetic manipulation of the human gut bacterium Eggerthella lenta reveals a widespread family of transcriptional regulators. Nat Commun. 2022;13:7624.
Alexander M, et al. Human gut bacterial metabolism drives Th17 activation and colitis. Cell Host Microbe. 2022 Jan 12;30(1):17-30.e9.
Kyaw TS, et al. Human gut Actinobacteria boost drug absorption by secreting P-glycoprotein ATPase inhibitors. iScience. 2024;27:110122.
Maini Rekdal V, Bess EN, Bisanz JE, Turnbaugh PJ, Balskus EP. Discovery and inhibition of an interspecies gut bacterial pathway for levodopa metabolism. Science. 2019;364:eaau6323.
谷禾健康
早高峰车流,空气中的细颗粒物;食物和饮水中可能存在的微量环境化学物;塑料在环境中不断降解形成的微塑料;农业生产中使用的农药,以及某些能够长期残留、蓄积的重金属……
这些东西离我们的生活并不遥远。但大多数时候,我们并不会特别意识到它们。
环境暴露往往不像一次感染那样,会让人突然发烧,也不像食物中毒那样,几个小时后就能明确感受到身体的变化。很多暴露的剂量很低,也没有什么特别感觉。
但如果,把时间从一天拉长到十年、二十年,甚至一生呢?它们会不会在身体里留下长期的生物学痕迹?
这个问题在自身免疫性疾病中尤其值得关注。流行病学数据表明,过去几十年,自身免疫性疾病的患病负担不断增加,但人的基因不可能在如此短的时间里发生同等程度的变化;双胞胎研究也提示,即使遗传背景非常接近,一个人最终是否发生系统性红斑狼疮、类风湿关节炎等疾病,仍然存在明显差异。
于是,研究的视线开始更多地转向基因之外:空气、饮食、化学物、生活方式,以及这些因素在一生中的累积影响。
这正是“暴露组(Exposome)”描述的东西。
本文我们看看这些外界因素,是如何被身体感知到,又可能怎样经过肠道微生态和免疫系统,一步步影响长期健康。理解这些,有助于寻找稳态发生偏移之前可能被识别和干预的环节。
我们每天都在暴露,只是很少意识到。
2005年,流行病学家 Christopher Wild 提出了一个概念:Exposome,暴露组。
如果说基因组(genome),描述的是一个人与生俱来的遗传信息,那么暴露组描述的,则是一个人从生命早期开始,一生经历的环境暴露总和。
这里的“环境”,比我们平时理解的要宽泛得多。
编辑
环境当然包括空气、水、气候、污染物;也包括饮食、吸烟、运动、职业环境等生活方式因素。
进一步往身体内部看,氧化应激、体内化学环境以及微生物群,也可以被看作暴露在人体内部留下的一部分生物学响应。
过去研究环境因素时,我们可能采用一对一的思路:
但真实生活显然不是这样。
一个生活在城市里的人,可能同时接触交通污染、不同来源的饮食成分、食品加工过程中使用的添加剂、环境中的微塑料和多种低浓度化学物质。而且这种暴露并不是只发生一天。它可能持续很多年。
编辑
因此,暴露组研究开始从单一因素,转向长期、低剂量、多因素共同暴露。
而要理解这些外界因素如何真正进入人体的生理网络,肠道是一个很重要的交汇点。
这里既直接面对大量外来物质,也聚集着微生物、代谢物、上皮屏障和大量免疫细胞。环境与人体的许多复杂互动,就发生在这里。
提到 PM2.5,我们首先想到的往往是肺。
但空气中的颗粒物进入呼吸道后,并不一定都停留在那里。
PM2.5,也会随着吞咽进入肠道
气道表面的黏液会黏住一部分颗粒,再由纤毛不断向咽部清除。这个过程每天都在发生,而其中一部分颗粒最终会随着吞咽进入消化道。
那么,这些颗粒进入肠道以后,会留下什么影响?
研究者已经观察到一些微生态层面的变化。
编辑
一项研究指出,在交通污染暴露较高的地区,人群肠道中的 Faecalibacterium prausnitzii 、Eubacterium rectale 有所减少。
注:这两类菌都是重要的产丁酸菌。丁酸水平的变化可能进一步影响结肠上皮能量代谢、紧密连接稳定性以及 Treg 相关的免疫调节。
研究提示,PM2.5 暴露可促进 ZO-1、Occludin 等紧密连接蛋白的降解,削弱肠上皮屏障完整性,并增加 LPS 等微生物来源成分跨越肠屏障的机会。
与此同时,PM2.5 还增加肠腔内活性氧(ROS)的产生,形成氧化应激。对于 Faecalibacterium prausnitzii、Eubacterium rectale 这类严格厌氧菌来说,氧化环境本身就不利于其生存;空气污染中的硫氧化物、氮氧化物还可能改变局部 pH,为部分耐受性更强的微生物创造不同的生态条件。
相比通过呼吸道间接进入肠道的颗粒物,我们日常生活中还有一些环境暴露,本身就是经口进入消化道的。
微塑料、农药、重金属,就是其中几类典型代表。
微塑料:先受到影响的,可能是黏液屏障
微塑料先改变黏液层和微生物生态位
微塑料进入肠道后,首先接触到的并不是上皮细胞,而是覆盖在其表面的黏液层。
动物研究显示,聚苯乙烯和聚乙烯微塑料暴露可造成肠道黏液层损伤,并抑制 MUC2 的表达。MUC2 是结肠黏液层最主要的黏蛋白之一,一旦其生成减少,原本用于隔开肠腔微生物和上皮细胞的物理距离也会随之缩短。
黏液层并不是简单的一层保护膜,它本身就是肠道微生态空间结构的一部分。像Akkermansia 这样的黏液相关菌,就生活在这一特殊生态位中。
研究表明,微塑料暴露伴随着 Akkermansia 减少、黏液层变薄,以及微生物与上皮直接接触增加。
而纳米塑料的问题还多了一层。
更小的纳米塑料进一步越过屏障,牵动局部免疫
由于颗粒尺寸更小,它们不仅可能穿过黏液层,还可以吸附其他环境污染物和微生物。有研究称之为:特洛伊木马效应。
BPA、重金属甚至附着在颗粒表面的细菌,都可能借助纳米塑料进一步进入肠道深层组织。
研究还发现,微塑料颗粒可在派尔集合淋巴结(Peyer’s patches)中聚集,并影响树突状细胞的抗原呈递功能,进一步增强 Th1 和 Th17 相关免疫反应。
也就是说,微塑料可能同时改变黏液层结构、微生物空间分布以及局部免疫识别环境。
农药:对肠道微生物形成选择压力
农药的作用方式又不太一样。
草甘膦可能改变菌群中的竞争关系
以草甘膦为例,它的主要作用靶点是植物中的莽草酸途径(shikimate pathway)。人体细胞没有这条代谢通路,但部分肠道微生物有。
这意味着,草甘膦进入肠道后,并不是对所有微生物产生同样的影响,而可能根据不同菌种对莽草酸途径的依赖程度,形成一种生态上的选择压力。
研究显示,草甘膦暴露与 Lactobacillus、Bifidobacterium 等减少有关,而部分对这一通路依赖较低或耐受性更强的 Clostridium、Salmonella 则可能获得相对生长优势。
这样的变化随后会反映到代谢层面。研究提示,草甘膦相关的菌群变化可伴随短链脂肪酸,尤其是产丁酸下降。SCFA 供应减少后,对 Foxp3+ Treg 分化和免疫耐受的支持也可能减弱。
注:这一部分需要谨慎。研究人员同时指出,很多实验中要达到明显菌群改变,使用的草甘膦浓度远高于普通人真实膳食暴露水平。
表1 暴露组分对肠道菌群和免疫系统的调节作用
编辑
doi: 10.1016/j.fct.2026.116331
重金属:影响微生物功能基因和生物转化能力
铅、镉、砷等重金属具有明显的生物蓄积特性。长期暴露下,它们的影响并不只停留在宿主细胞,也可能深入到肠道微生物的基因表达和代谢活动。
从菌群组成,到耐药基因组的重塑
研究显示,镉和铅暴露可促进肠道细菌中抗生素耐药基因的传播,也就是影响微生物群落的耐药基因组。这种传播可以通过细菌之间的水平基因转移发生。
这意味着,环境暴露带来的选择压力,可能进一步改变整个肠道微生物群携带的功能基因(包括它们具备怎样的耐受能力、携带哪些功能基因,以及这些基因如何在群落内部传播)。
微生物,也参与决定砷在体内如何被转化
动物研究显示,砷暴露可以损害肠道菌群对砷的生物转化能力,并导致包括单甲基砷酸在内的毒性代谢物积累,进一步加重氧化应激和系统性炎症。
关于重金属和肠道菌群,谷禾在之前的文章中有过更多阐述,详见:
因此,在某些环境化学物的暴露中,肠道菌群既可能是被影响的一方,也可能反过来参与决定这些物质最终形成怎样的代谢产物,以及宿主实际面对怎样的生物学暴露。
这也是为什么,当我们讨论环境因素与健康的关系时,仅仅测量外界暴露浓度往往还不够。进入人体生理系统的,已经不是最初的那个化学物,而是经过微生物和宿主共同代谢之后形成的一整套新的分子环境。
但这些发生在肠道里的变化,并不会一直停留在肠腔内部。
当代谢环境和屏障状态同时发生变化,一些原本被限制在肠腔中的微生物信号,就有机会进一步进入宿主的免疫视野。
食品乳化剂、微塑料和草甘膦等暴露可能与 Zonulin 介导的肠道通透性调节有关。Zonulin 是参与调节细胞间紧密连接的蛋白;相关信号可激活 EGFR(表皮生长因子受体)通路,使紧密连接蛋白与细胞骨架之间的连接发生改变,细胞间隙随之扩大。
原本主要被限制在肠腔中的细菌抗原、LPS(脂多糖)、肽聚糖以及部分未完全消化的食物蛋白(例如,麸质-醇溶蛋白),都可能获得更多机会穿过细胞之间的通路,进入肠黏膜固有层。
其中最典型的一类信号,就是 LPS。
LPS 原本是革兰阴性菌外膜的组成成分。在肠道屏障完整时,它主要被限制在肠腔内;但当屏障通透性增加,LPS 等微生物来源成分就更有机会接触黏膜免疫细胞,甚至进入循环。
更多关于LPS 可以看谷禾之前详细写过的文章:
LPS 一旦被识别,炎症通路就会启动
LPS 是革兰阴性菌外膜的重要组成成分。对于免疫系统来说,它并不是一个普通的细菌碎片,而是一类高度明确的微生物存在信号。
巨噬细胞、树突状细胞等先天免疫细胞表面的 TLR4可以识别 LPS,随后激活下游 NF-κB 信号通路,促进 IL-1β、IL-6、TNF-α 等促炎因子的表达。
这套反应本身并不是坏事。短时间内,它是免疫系统面对细菌入侵时非常重要的防御机制。
需要关注的是刺激的持续时间和频率。
如果微生物来源的信号长期、反复进入免疫系统,TLR4—NF-κB 这套通路就可能持续处于被激活的状态。
这种由肠源性 LPS 持续进入循环所形成的状态称为代谢性内毒素血症。
也就是说,问题不一定来自某一次强烈刺激,而可能来自低强度、长时间、反复出现的免疫输入。
这也是环境暴露研究越来越重视长期累积的原因。
同样是外界暴露,进入免疫系统的信号量未必相同
我们通常衡量环境暴露,会关注空气中有多少 PM2.5、食物中有多少某种化学物,或者一个人接触了多久。
但从人体内部来看,外界暴露量并不等于免疫系统最终实际面对的生物学刺激量。
在两者之间,还隔着肠道微生态、微生物代谢、黏液层和上皮屏障等多个环节。
如果屏障完整,很多微生物成分仍然被限制在肠腔内;如果屏障通透性升高,免疫系统实际接收到的信号就可能不同。
从这个角度看,一个人的内部状态,本身就是环境暴露最终产生怎样生物学效应的一部分。
这提示我们:当外部暴露无法完全避免时,身体内部如何处理这些暴露,同样值得关注。
持续的抗原暴露,会增加免疫“误伤”的机会
如果刺激继续存在,问题还可能进一步深入到免疫耐受。
长期的细菌抗原输入可能参与分子模拟。
有些微生物抗原与人体自身蛋白在结构上存在一定相似性。免疫系统原本针对微生物建立的抗体或 T 细胞反应,在特定情况下可能同时识别人体自身成分。
例如,针对细菌 HSP60 产生的抗体可能与人体 HSP60 发生交叉反应,从而与血管内皮损伤和自身免疫性血管炎等过程相关。
编辑
到这里,除了关注炎症高不高,还可以看免疫系统是否还能准确区分什么需要攻击,什么应该耐受。
而在这套判断机制中,还有一个非常特别的分子节点。
它一边接收来自肠道微生物的代谢信号,一边也能直接感知某些环境污染物。
这个节点,就是 AhR。
芳香烃受体,AhR (Aryl Hydrocarbon Receptor)。
它最早因为能够响应二噁英等环境化学物而受到关注,因此很长时间里,人们把它理解为一个环境污染物感受器。
但现在看来,AhR 的角色远比这复杂。
在肠道中,它本身就是连接微生物代谢、黏膜屏障、免疫调节的重要节点。
同一个受体,可以接收完全不同来源的信号
正常情况下,部分乳杆菌属、双歧杆菌属可以参与色氨酸代谢,产生吲哚-3-醛、吲哚-3-乙酸等吲哚类代谢物。这些微生物来源的小分子可以作为 AhR 的天然配体。
AhR 被激活后进入细胞核,与 ARNT 结合,再作用于特定 DNA 调控区域,影响下游基因表达。
在生理状态下,这类信号有助于促进 IL-22 产生,并参与 Foxp3+ Treg 的维持,从而支持黏膜屏障和免疫耐受。
这也是为什么,有时候就只看菌群组成还不够,决定宿主接收到什么信号的,是这些微生物正在进行怎样的代谢。
污染物也能进入这套信号系统
问题在于,AhR 并不只识别微生物来源的配体。
二噁英、PCB(多氯联苯)、PAH(多环芳烃)等环境污染物,同样可以与 AhR 结合。而且部分外源化学物对 AhR 具有更高的亲和力,并可能造成更加持续的受体激活。
以 TCDD 为例,研究提出,这类外源配体可能干扰 AhR 正常的降解和关闭过程,使信号持续存在。
同样是 AhR,被不同来源、不同强度、不同持续时间的配体激活,产生的免疫结果并不完全一样。
这也是 AhR 研究最值得关注的地方:环境化学物和微生物代谢物,实际上可能在竞争同一个宿主信号入口。
AhR信号方式改变→Treg/Th17 平衡也改变
AhR 信号异常后,一个重要的下游结果,是 Treg / Th17 平衡发生偏移。
Treg 负责维持免疫耐受,限制过度炎症;Th17 则更偏向促炎反应。
编辑
研究指出,污染物造成的持续 AhR 激活可能抑制 Foxp3+ Treg 的形成,同时促进 Th17 相关反应,使 IL-17/IL-22 轴向更明显的促炎方向偏移。
空气颗粒物还可以通过 AhR 激活树突状细胞,增强抗原呈递,并进一步促进自身反应性 T 细胞的激活。
这也提供了一个理解个体差异的角度。面对同一种外界暴露,不同人的肠道微生态、色氨酸代谢能力、屏障状态和免疫调节基础并不会完全一致。
而有些环境影响,甚至可能比一次炎症反应持续得更久。因为它们能够进一步改变基因的使用方式。
AhR连接污染物、肠道菌群与免疫机制
编辑
doi.org/10.3389/fmicb.2026.1737229
我们的 DNA 序列通常不会因为一次环境暴露而改变。
但同一套 DNA,可以有完全不同的表达方式。
这就是表观遗传。
重金属,可能让部分 T 细胞基因更容易打开
DNA 甲基化是调节基因表达的重要方式之一,而维持这一过程的重要酶是 DNMT。
注:DNMT,DNA methyltransferase,DNA 甲基转移酶。通过SAM辅因子将甲基转移至胞嘧啶,调控基因表达与细胞分化,其异常与多种肿瘤的发生发展密切相关。
研究表明,重金属等环境毒物可抑制 DNMT 活性,引起 DNA 低甲基化。
在 CD4+ T 细胞中,CD11a(LFA-1)、CD70、KIR 等基因启动子区域发生低甲基化后,其表达增加,可能使 T 细胞逐渐呈现更强的自身反应性表型。
也就是说,即使最初的环境刺激已经过去,免疫细胞的功能状态仍可能留下一段时间的改变。环境暴露的影响,也就从一次免疫反应,进一步进入了免疫细胞本身的基因调控层面。
编辑
另一种变化发生在 Foxp3 上。
Foxp3 是维持 Treg 功能的重要调控因子。研究提到,当 Foxp3 启动子发生高甲基化后,其表达可能受到抑制,Treg 维持免疫耐受的能力也可能随之减弱。
这样一来,问题就更具体了:
一些原本该受限制的自身反应性 T 细胞可能更容易被激活,而负责维持免疫耐受的 Treg 调节作用又可能减弱。
当这两类变化同时存在时,免疫系统对自身组织的容忍边界就可能变得更不稳定,开始向不利的方向偏移。
不只是 DNA 甲基化,炎症基因本身也可能变得更容易启动
环境暴露还可以作用于染色质结构。
研究提到,PM2.5 和氧化应激能够改变 HDAC(组蛋白去乙酰化酶) 活性,使 IL-6、TNF-α 等炎症相关基因所在的染色质区域更加开放,也就是更容易被转录。
这里其实出现了一个很有意思的交汇。
前面我们讲过,菌群产生的短链脂肪酸,尤其丁酸,本身也具有HDAC抑制作用,并参与 Foxp3+ Treg 的调节。
也就是说,环境污染带来的氧化应激,与肠道微生物产生的代谢信号,可以在同一类表观遗传调节机制上发生交汇。
这也是为什么单纯讨论暴露了多少污染物,有时还不足以解释人与人之间不同的生物学反应。进入人体之后,这些外来信号并不是在一张白纸上发挥作用。它面对的,是一个原本就存在差异的代谢、微生态和免疫背景。
砷还可能通过 microRNA 改变炎症的刹车系统
表观遗传调控还包括 microRNA。
砷和 BPA 暴露可改变 miR-146a、miR-155 等免疫调节 microRNA 的水平。
其中,miR-155 过度表达会抑制 SOCS1。SOCS1 原本是细胞因子信号中的一个重要负调节因子,可以理解为 JAK/STAT 通路上的刹车。当 SOCS1 被抑制后,JAK/STAT 信号可能持续活跃,慢性炎症也更容易被维持。
所以,长期环境暴露值得关注的,它还可能逐渐改变免疫系统的反应阈值和调节方式。
而当这种状态持续足够久,另一个变化开始出现——免疫系统本身,也可能提前进入衰老。
我们通常用年龄来理解衰老。但对免疫系统来说,身份证上的年龄,不能解释全部差异。
同样是50岁,有些人的免疫系统仍然保持较好的调节能力;另一些人却可能已经出现更明显的慢性炎症、免疫耗竭和衰老细胞积累。
长期环境压力就是其中一个值得研究的因素。
研究表明,长期存在的氧化应激、DNA 损伤和慢性炎症,都可能推动免疫细胞更早出现衰老特征。
PM2.5、重金属等环境暴露与免疫细胞端粒缩短有关,并可能推动细胞进入复制性衰老。
注:复制性衰老指正常体细胞因反复分裂导致端粒不断缩短、触发DNA损伤应答,达到分裂极限后发生的不可逆增殖停滞状态。它与端粒酶活性降低密切相关。
衰老细胞会持续释放炎症信号
端粒不断缩短后,一些免疫细胞逐渐失去正常的增殖能力。但这并不意味着它们会安静地退出。
进入衰老状态的细胞可能形成 SASP(Senescence-Associated Secretory Phenotype,衰老相关分泌表型),持续释放 IL-6、IL-1β、MMPs、趋化因子等炎症信号。
这些信号又会改变周围组织环境,甚至推动邻近细胞出现衰老特征。
于是,一个循环开始形成:
慢性炎症和环境压力推动细胞衰老,而衰老细胞又继续制造炎症。
这也是炎症性衰老的重要特征——没有明显感染,身体却长期处于一种低水平、难以完全消退的炎症状态。
前面提到的肠源性 LPS,在这里也有了更长期的意义。研究提出,持续的 LPS 转位和 TLR4 刺激可能使免疫系统长期难以回到静息状态,并与免疫细胞出现耗竭表型有关。
动物研究:老龄菌群可参与推动炎症性衰老
这也引出了另一个问题:
随着年龄增长而发生的肠道菌群变化,只是衰老的结果,还是也可能反过来参与炎症性衰老?
动物实验给出了一些更直接的线索。
一项研究将老龄来源的肠道菌群转移给无菌小鼠,结果显示,这种菌群转移能够促进受体出现系统性炎症性衰老。也就是说,至少在这一动物模型中,老龄微生态本身具有推动炎症性衰老的能力,而不只是随着衰老被动发生变化。
另一项小鼠研究进一步发现,老龄小鼠肠道菌群来源的LPS能够激活TLR4,并增强巨噬细胞的炎症反应。
当然,目前菌群推动免疫衰老的直接证据仍以动物实验和机制研究为主,但这些研究至少提示:
长期环境压力作用于人体时,决定免疫系统最终处于怎样的状态的,可能不仅是外界暴露本身,还包括体内长期存在的炎症和微生态信号背景。
当这种状态继续积累,变化还会进一步进入 T 细胞和 B 细胞层面。
而这就把问题推向了下一步——免疫系统为什么会越来越容易把攻击指向自身组织?
免疫系统衰老之后,出现的并不只是防御能力下降。一些已经带有明显衰老特征的免疫细胞,反而会保留较强的炎症和组织攻击能力;与此同时,另一部分 B 细胞开始更容易产生针对自身成分的抗体。
免疫衰老因此并不是简单地让免疫反应越来越弱,而是让整个免疫系统的工作方式发生偏移。
类风湿关节炎和系统性红斑狼疮中的一些免疫细胞变化,就提供了两个很具体的例子。
T 细胞:衰老之后,组织攻击能力仍可能保留
在类风湿关节炎(RA)研究中,一类具有衰老特征的 CD4+CD28− T细胞受到关注。
这类细胞已经失去 CD28 共刺激分子,并表达 CD57、KLRG1 等衰老相关标志,但仍能够释放穿孔素(perforin)和颗粒酶(granzyme),产生直接的细胞毒性作用。
这类细胞可以在类风湿关节炎患者的关节滑液中积累,并被认为可能直接参与关节软骨损伤。
也就是说,免疫细胞变老之后,攻击能力与正常调控之间逐渐失去平衡。
编辑
B 细胞:针对自身成分的抗体更容易出现
研究关注到一类年龄相关B细胞(ABCs,Age-associated B Cells),在长期抗原刺激和细胞压力下,初始 B 细胞的发育可能受到抑制,而 ABCs 逐渐扩增。
与产生针对病原体的保护性抗体相比,这类细胞更倾向产生针对自身 DNA 和核蛋白的抗体,例如 anti-dsDNA 和 ANA。
在系统性红斑狼疮患者中,ABCs 的比例还与疾病活动程度以及狼疮性肾炎相关。
一个是具有组织损伤能力的 T 细胞积累,一个是更容易产生自身抗体的 B 细胞扩增。
当然,这并不是说某种污染物会沿着一条固定路径最终导致类风湿关节炎或系统性红斑狼疮。自身免疫病本身就是遗传、感染、环境和免疫状态等多种因素共同参与的复杂疾病。
表2 暴露体诱导的自身免疫和免疫衰老的细胞和分子特征
编辑
doi: 10.1016/j.fct.2026.116331
先降低外部压力,再稳住肠道这个界面;如果内部状态已经发生偏移,再找到具体环节进行纠正。
环境接触,既做减法,也可做加法
能减少的明显暴露,当然首先应该减少。比如说吸烟、二手烟、职业性污染物以及持续的高污染环境暴露等。
但环境健康研究正在出现另一个有意思的方向:环境并不只有有害暴露,还存在可能促进健康的有益暴露。
最近的一篇研究提出,有益暴露其中包括绿地、森林环境以及植物释放的挥发性化合物。
编辑
doi.org/10.1186/s40246-025-00882-y
比如森林空气中的α-蒎烯,在细胞实验中可以抑制 LPS 诱导的 MAPK/NF-κB 信号,并降低 IL-6、TNF-α、iNOS、COX-2;一些人体森林浴研究还观察到 NK 细胞数量和活性升高,而且变化可持续超过 7 天。
这种影响也不只体现在免疫细胞上。人体森林浴研究中,富含植物挥发物的森林环境还伴随尿液皮质醇、肾上腺素和去甲肾上腺素下降;短期森林停留后,也观察到血清皮质醇、尿肾上腺素和血压降低。
这为我们提供了一个很好的视角:环境干预未必只有躲开什么,未来也可能包括主动增加一些对免疫和压力调节更友好的环境暴露,比如说多接触户外大自然,空旷的草坪,森林等。
稳住肠道微生态和屏障,让它更有缓冲能力
当一部分暴露无法避免时,更现实的问题就变成:进入肠道以后,这套系统能不能维持稳定。
饮食
高纤维的地中海式饮食,比如更多蔬菜、水果、豆类、全谷物、坚果,配合适量鱼类,与更丰富、更稳定的肠道菌群以及较低的系统炎症相关。
研究表明,较高依从性的地中海饮食与 CRP、IL-6 等炎症指标降低以及更好的 T 细胞功能相关。
从菌群机制上也很好理解:膳食纤维给产短链脂肪酸菌提供底物,丁酸等代谢物又参与维持上皮屏障和 Treg 稳态。
益生菌、益生元
益生元、益生菌及合生元也被研究用于提高微生物多样性、屏障功能和 IgA 相关黏膜免疫。
酸奶、开菲尔、豆豉和泡菜等发酵食品富含益生菌。一些益生菌产生活性神经元化合物或充当载体。一些双歧杆菌和乳酸杆菌菌株分泌γ-氨基丁酸 (GABA),增加黏液分泌、强化紧密连接,并通过 SCFA 抑制 NF-κB 炎症信号。
不过,即使同样增加膳食纤维,有些人的菌群能够有效利用并产生预期代谢物,有些人却未必;不同益生菌菌株的活性、定植能力和代谢功能也差异很大。
植物来源的活性成分
除了直接补充益生菌、益生元,一些植物来源的活性成分也可能改变肠道中的生态选择压力。
比如在 LPS 诱导肠道炎症的小鼠模型中,山苍子精油干预后,肝脏和肠道中的TNF-α、IL-6、IL-1β 水平下降,同时 Lactobacillaceae、Lachnospiraceae 等菌群增加,并伴随结肠隐窝和上皮完整性的改善。
体外研究发现,香芹酚、肉桂醛、柠檬醛、百里香酚等植物挥发性成分,对C. perfringens、E. coli、部分Salmonella等潜在致病菌抑制更明显。
注:真实人体肠道中的有效剂量和长期影响还需要验证。
判断稳态偏移发生在哪里
如果一个人的问题主要是产丁酸功能不足,和 LPS 相关信号偏高或者屏障状态不佳,显然不一样。
因此,干预前不妨看一下菌群结构,微生态恢复力,短链脂肪酸、色氨酸等代谢功能有没有偏移,屏障和 LPS 相关信号是否异常等。
编辑
<来源:谷禾健康肠道菌群检测数据库>
已经发现偏移——做针对性的纠正
文中我们了解到,一些污染物进入体内会引发氧化应激和慢性炎症,那么针对已经出现的这些问题,也有一些干预措施。
多酚类
白藜芦醇在衰老或慢性炎症小鼠模型中,被观察到可以提高 T 细胞增殖和 NK 细胞活性,同时降低 IL-6、TNF-α。
姜黄素则在细胞和动物研究中表现出抑制 NLRP3 炎症小体、促进自噬以及上调 SIRT1 等作用。姜黄素的作用还有一部分经过肠道菌群。详见谷禾之前的文章:姜黄素与肠道微生物群之间的互作:姜黄素对健康影响的益处
其他例如绿茶儿茶素、可可等富含黄酮的干预,在部分老年人研究中与 NK 细胞活性、疫苗抗体反应以及炎症指标改善有关。
Omega-3
EPA、DHA一方面可以影响 PPAR 和 NF-κB 等炎症通路,另一方面还是消退素、保护素等促炎症消退介质的前体。
也就是说,不仅是减少炎症产生,还涉及帮助已经发生的炎症正常结束。
维生素D
维生素D参与巨噬细胞、树突状细胞以及T细胞分化。在一项针对维生素D缺乏老年人的随机临床试验中,维生素D联合N-乙酰半胱氨酸干预 8 周后,外周血单个核细胞中的 p16、IL-6、TNF-α 等衰老和炎症相关指标下降。
当明确存在营养缺乏时,纠正缺乏本身可能减少额外的免疫压力。
睡眠和运动
长期睡眠不足会提高 IL-6、TNF-α,削弱 T 细胞增殖,并影响抗体应答。
规律运动与更低的CRP、IL-6、TNF-α以及更年轻的 T 细胞组成相关;一些老年人阻力训练研究还观察到,SASP 相关炎症介质和 T 细胞衰老指标下降。
现实生活中,很多暴露剂量并不高,也不会让身体立刻出现明显反应。我们也很难做到生活在一个完全没有环境暴露的世界里。
更值得关注的是,这些长期、低剂量的外部信号进入身体以后,会经过怎样的微生物代谢、屏障和免疫调节,最终形成不同的生物学结果。
这也是我们为什么越来越关注肠道微生态。环境告诉我们,身体正在面对什么;肠道微生态则提供了一个观察身体内部如何响应这些信号的窗口。
未来研究也正从单一污染物模型,走向更接近真实生活的低剂量混合暴露;从横截面的菌群比较,走向菌群长期追踪;再把微生物组、代谢组、免疫指标和暴露数据结合起来,理解为什么面对相似的外部环境,不同人的生物学反应仍然可能不同。
干预没有统一答案,因为不同产品作用在不同节点;而肠道菌群检测可以帮助找到这些重要节点,并观察这个节点有没有按照预期发生变化。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献:
Daşdemir FO, Sari MF, Aktaş B, Kocazeybek B. The Exposome-Autoimmunity Axis: Environmental Xenobiotics, Gut Dysbiosis, and Potential Pathways to Immunosenescence. Food Chem Toxicol. 2026 Aug 10:116331.
Fouladi F, Bailey MJ, Patterson WB, Sioda M, Blakley IC, Fodor AA, Jones RB, Chen Z, Kim JS, Lurmann F, Martino C, Knight R, Gilliland FD, Alderete TL. Air pollution exposure is associated with the gut microbiome as revealed by shotgun metagenomic sequencing. Environ Int. 2020 May;138:105604.
Kim, J.J.H., Yang, T.B., Zhang, X. et al. Harnessing phytochemicals for engineering health solutions. Hum Genomics 20, 36 (2026).
Li, Z., Li, Y., Yurong, T. et al. Microplastics, the gut microbiome and ageing: mechanisms and intervention strategies. Environ Geochem Health 48, 466 (2026).
Merra, G.; Gualtieri, P.; La Placa, G.; Frank, G.; Della Morte, D.; De Lorenzo, A.; Di Renzo, L. The Relationship between Exposome and Microbiome. Microorganisms 2024, 12, 1386.
谷禾健康
高血压是全球范围内最常见的心血管疾病之一,被称为威胁人类健康的”无声杀手”。在很多人看来,高血压只是“血管的问题”,长期以来,习惯于从遗传、饮食、压力等角度去理解它的成因,却很少意识到,高血压其实是牵动全身多个系统的“联动反应”。不仅与单一因素相关,还涉及神经系统、内分泌系统、体液系统和免疫系统等多个器官系统。
与此同时,在我们身体深处还住着另一位”隐形参与者”——肠道菌群。数以万亿计的微生物栖息于消化道,它们并非沉默的旁观者,而是深度参与免疫调节、代谢合成乃至神经信号传递的活跃角色。那么,血压的升降,是否也与这些微生物息息相关呢?
近年来研究带来了更清晰的解释:在高血压状态下,肠道紧密连接蛋白异常表达、肠黏膜通透性升高,菌群结构失调,导致肠屏障受损。此时,细菌及其代谢产物(如内毒素)更易越过黏膜进入体循环,引发系统性炎症反应,并进一步损害心血管功能,形成“肠漏—炎症—血压升高”的恶性循环。
与此同时,经典危险因素如高盐饮食也已被证实会通过改变肠道菌群组成(例如厚壁菌门/拟杆菌门比值异常升高)影响血压水平。这些发现为我们理解高血压的发病机制提供了一个全新的病理生理框架:肠道,或许正是血压调控一个被长期忽视的关键节点。
更令人振奋的是,运动训练展现出了打破这一恶性循环的潜力。动物实验与人群研究一致表明,中等强度运动能够恢复肠绒毛长度、增加杯状细胞数量、上调紧密连接蛋白表达,从而修复肠道屏障、抑制局部炎症;同时,运动还可重塑肠道菌群结构及其代谢谱(如Faecalibacterium prausnitzii、双歧杆菌属、乳杆菌属、Roseburia属和拟杆菌属),经由短链脂肪酸(SCFAs)、脂多糖(LPS)、氧化三甲胺(TMAO)及胆汁酸等多条代谢通路参与血压调控。不仅如此,运动通过肠-脑轴双向通路影响交感神经活动与神经炎症,进一步从中枢层面发挥持续降压效应。换言之,一次规律的运动,不仅锻炼了肌肉与心肺,也在悄然重塑着我们肠道内的微生态世界。
本文将围绕”肠道菌群—运动—高血压“这一三角关系,系统梳理高血压状态下肠道结构与功能的病理改变,深入解析运动经由菌群代谢物、免疫调节与肠脑轴等多重通路发挥降压作用的科学证据,并探讨这一领域对未来高血压防治策略的启示。通过这些来自微观世界的发现,能为广大读者打开一扇重新认识高血压的窗口——血压的管理,或许不仅在于”管住嘴、迈开腿”这般简单,更在于倾听肠道里那些微生物与身体之间的深层对话。
doi: 10.1080/10641963.2025.2608905.
高血压、肠道健康与锻炼之间并非孤立存在,而是可以通过多重生理通路相互牵连。
高血压状态下的肠道结构与功能改变
高血压与肠道健康之间存在密切且双向的联系。
↘ 高血压患者常伴随肠道屏障失衡
动物实验证实,高血压状态伴随肠道紧密连接蛋白表达异常、肠黏膜通透性增加以及菌群结构失调。
在自发性高血压大鼠等模型中,可观察到肠绒毛萎缩、杯状细胞数量减少、肠壁纤维化及屏障功能减退等病理改变。
↘ 肠屏障受损使有害物质进入从而触发炎症反应
肠屏障完整性受损使得细菌及其代谢产物(如内毒素)易于跨越黏膜进入体循环,进而触发系统性炎症反应,并对心血管系统产生负面影响。这一”肠漏—炎症—血压升高“的恶性循环,为理解高血压的发病机制提供了新的病理生理框架。
高盐饮食可能通过菌群失调影响高血压
高盐饮食是高血压与心血管疾病的主要诱因之一。
↘ 高盐饮食伴随肠道菌群改变和血压升高
近期研究表明,肠道菌群失调可能是盐敏感性高血压(SSH)的重要致病因子。研究证实,实验大鼠在8%钠盐饮食条件下,肠道微生物群组成发生显著改变,同时收缩压与舒张压明显升高。
↘ SSH 患者厚壁菌门/拟杆菌门比值升高
进一步临床研究显示,SSH 患者与非盐敏感性高血压患者之间存在明显的菌群差异,特定细菌丰度的变化与 SSH 严重程度显著相关,其中最具代表性的改变是厚壁菌门/拟杆菌门(F/B)比值异常升高。
运动展现出修复肠道屏障和降压效果
↘ 运动能改善高血压患者的肠道健康
运动训练已被证明能显著改善高血压动物模型中的肠道健康。它可恢复肠绒毛长度、增加杯状细胞数量、减轻肠壁纤维化,并上调紧密连接蛋白的表达水平,从而改善肠道病理状态并抑制局部炎症。这些效应有助于维持肠屏障完整性,减少有害物质向循环系统的渗漏。
↘ 运动可能通过肠脑轴降压
在自发性高血压(SHR)模型中,运动训练展现出与肠-脑轴重新平衡密切相关的持续降压效果:运动训练可能通过调节肠道微生物群的组成及其代谢产物,影响钠盐的吸收与代谢,从而发挥血压调节作用。
该干预能够减轻肠壁结构异常、防止屏障破坏,并抑制有害因子的系统性扩散,从而恢复肠道微生物平衡,经由肠-脑轴双向通路积极影响血压。
通过16S rRNA测序,研究者发现运动训练可促进与正常血压相关的肠道菌群在SHR大鼠中增加;肠道微生态的恢复对血压具有积极作用。
↘ 运动后毛螺菌科中的产乙酸、丁酸盐菌增加
另有研究表明,运动训练可通过重塑肠道微生物组成调节血压,并显著改善高血压模型的菌群结构:高血压组表现出厚壁菌门(firmicutes)增多和拟杆菌门(Bacteroidetes)减弱,干预后这一比例发生逆转。这一转变的特点是毛螺菌科(Lachnospiraceae)和瘤胃球菌科(Ruminococcaceae)科中产乙酸盐和丁酸盐的细菌数量增加,乳酸产菌水平下降。
尽管运动影响肠道微生物及血压的具体机制仍不清晰,但现有证据提示,高血压与肠道之间的“对话”受肠道微生物群及其代谢物调控。
★ 菌群多样性与血压有关
研究发现,肠道微生物多样性与血压水平呈负相关,即菌群多样性越低,血压升高的风险越大。肠道微生物群通过产生多种生物活性代谢物参与血压调控,其中短链脂肪酸、脂多糖、三甲胺-N-氧化物及胆汁酸四条通路研究最为深入。
肠道微生物群及其代谢物影响血压调节
doi: 10.1080/10641963.2025.2608905.
而运动训练可通过重塑菌群结构与代谢谱,经由这些通路发挥降压效应。
短链脂肪酸(SCFAs)通路
—“免疫抗炎 + 肠屏障保护、激活肠源激素-中枢调控”
短链脂肪酸(SCFAs)——主要包括乙酸盐、丁酸盐和丙酸盐——是最早被发现的血压调节性肠道代谢物之一。
↘ SCFAs通过G蛋白偶联受体调节血压中枢
SCFAs 由肠道微生物发酵膳食纤维产生,可直接激活位于肠黏膜中的G蛋白偶联受体(GPCRs),这些受体广泛表达于从胃肠道黏膜到免疫细胞与神经系统的多种细胞类型。受体激活刺激肠内分泌细胞释放胰高血糖素样肽-1(GLP-1)和肽 YY(PYY)等肠源性激素,后者经血液循环到达中枢神经系统,调节血压调控中枢的活性。
↘ 丁酸盐可以抑制Th17介导的血管炎症反应
与此同时,SCFAs 的缺乏会破坏肠道屏障完整性,进而促使血压升高。其中,丁酸盐还可通过抑制组蛋白去乙酰化酶(HDACs)下调促炎基因表达,并促进调节性 T 细胞分化,从而抑制 Th17 介导的血管炎症反应。
↘ 运动可能通过短链脂肪酸通路发挥降压作用
影响因子:3.998
在人群干预层面,有研究对 17 名超重成年女性实施了为期六周的耐力训练,发现重塑了血清/粪便代谢谱并改善肠道菌群多样性,伴随与心血管相关的脂质代谢特征变化(如血清溶血磷脂酰胆碱升高、粪便甘油磷酸胆碱升高,并与阿克曼氏菌(Akkermansia)丰度相关)。
并且运动训练后参与者粪便中拟杆菌属、毛螺菌科细菌及梭菌纲细菌显著富集,而这些类群均与 SCFA 的产生密切相关,提示运动训练可经由短链脂肪酸(SCFA)通路发挥降压作用。
脂多糖(LPS)通路
—“抑制内毒素产生与释放、减弱炎症/内毒素血症”
脂多糖是革兰氏阴性菌外膜的主要内毒素成分。
↘ 高血压患者脂多糖代谢通路显著增强
影响因子:4.545
肠道微生物群分析显示,高血压患者体内脂多糖(LPS)的生物合成与代谢通路活性显著高于健康对照。动物研究进一步发现:2月龄与21月龄的小鼠经四周训练后,血清 LPS 水平均出现下调。
↘ 运动可能减少了脂多糖的产生和释放
在菌群层面,以革兰氏阴性菌为主的丰度与脂多糖(LPS)水平呈正相关,而运动训练可降低拟杆菌属等的丰度,从而减少 LPS 的产生与释放。LPS 诱导的炎症反应及内毒素血症的减弱,对高血压患者具有明确的治疗获益。
氧化三甲胺(TMAO)通路
—“降低TMAO蓄积,改善血管功能与血压关联风险”
三甲胺在体内氧化后形成三甲胺-N-氧化物(TMAO),其产生依赖于肠道微生物群的代谢活动。
↘ 运动能降低氧化三甲胺浓度来改善血压
编辑
影响因子:4.556
人群研究表明,血液 TMAO 水平升高与血管功能受损及血压升高相关。在运动干预方面,久坐小鼠在西方饮食条件下 TMAO 水平显著高于具有运动训练的小鼠;而当运动小鼠额外补充 TMAO 后,其 TMAO 水平与久坐小鼠趋于接近。
编辑
doi: 10.3390/ijms24032399.
这一结果提示,运动训练可能通过降低 TMAO 水平,帮助维持血压与血管健康。
胆汁酸通路
—“通过FXR/TGR5受体信号调控血压,并与心血管风险相关”
肠道微生物群在胆汁酸的二次代谢中发挥关键作用。除参与胆固醇代谢外,胆汁酸还可通过激素分泌与受体信号机制影响血压。
↘ 共轭胆汁酸可通过调控胆汁酸受体活性影响血压
在血管紧张素 II(AngII)灌注小鼠模型中发现,粪便胆汁酸排泄量增加,且与冠状动脉疾病风险呈负相关,提示胆汁酸水平可能与心血管疾病风险相关。
进一步研究表明,共轭胆汁酸可通过调节法尼醇 X 受体(FXR)和 TGR5 等胆汁酸受体活性来降低血压,揭示了胆汁酸在血压调控中的潜在作用。
↘ 运动可通过影响胆汁酸水平调节血压
编辑
影响因子:3.469
在运动干预层面,一项针对年轻久坐成年人的研究显示,阻力运动训练可提高血浆胆汁酸水平,表明胆汁酸水平可经由运动训练调节,进而可能对血压控制产生积极影响。
综合上述四条通路可以看出,中等强度运动训练不仅能够显著影响人类肠道微生物群的结构与多样性,也会进一步改变其相关代谢物的组成与代谢特征。
更重要的是,这些与肠道微生态相关的改变能够通过短链脂肪酸(SCFAs)、脂多糖(LPS)、氧化三甲胺(TMAO)以及胆汁酸等多条代谢通路参与血压调控过程,从而在肠-宿主互作层面为血压相关的改善提供潜在基础。
然而,这些效应背后的具体分子机制仍有待进一步阐明。
肠道不仅是消化器官,也是人体最大的免疫器官。肠道微生物群通过与免疫细胞的相互作用调节免疫系统的反应。肠道微生物群的平衡使免疫细胞能够高效识别并消除病原体,从而维持生物体的健康状态。
肠道屏障受损:高血压“微生态-炎症”起点
文献表明,高血压的发生机制与肠道屏障完整性受损密切相关。高盐饮食或过度的交感神经激活可破坏肠道紧密连接蛋白,进而增加肠道通透性。
↘ 高盐饮食脂多糖增加并诱发炎症反应
通透性升高使细菌、微生物及其代谢物进入循环,促进中性粒细胞活化。在相关病理条件下,肠道微生物群失调表现为脂多糖(LPS)产生增加;LPS与Toll样受体4(TLR4)相互作用引发炎症反应。随后,当LPS从肠道转移至循环系统并与LPS结合蛋白(LBP)形成复合物时,可激活免疫系统并产生促炎细胞因子。
这些因子不仅推动全身炎症,也可通过激活交感神经系统进一步增加周围血管阻力,从而导致血压升高;此外,系统性LPS可能直接作用于中枢神经系统,诱发神经炎症,进一步加重高血压的发病过程。
T细胞活化与血管内皮损伤
编辑
影响因子:7.713
↘ 自发性高血压免疫球蛋白A缺失、菌群失衡
研究发现,自发性高血压大鼠(SHR)在多种部位出现选择性IgA缺乏,在粪便、盲肠内容物、血清及肝/小肠中IgA水平显著低于正常组,且在不同来源、不同性别及不同年龄段均观察到该趋势。
肠道菌群失调伴随清除能力不足信号:SHR既有粪便菌负荷减少(且部分菌群如双歧杆菌几乎难以检测),又有盲肠细菌负荷升高,提示菌群生态失衡与排出/清除异常并存。
↘ 活化的T细胞浸润主动脉会损害内皮功能并升高血压
T细胞在促炎性高血压级联反应中至关重要。活化的T细胞随后浸润主动脉,损害内皮功能并升高血压,进一步证实T细胞激活在高血压发病机制中的关键作用。
运动:修复肠道屏障、降低免疫过度激活
编辑
影响因子:7.74
运动训练对高血压的有益作用可部分通过调节并修复肠道屏障实现:肠道屏障的改善能够改变肠道环境,抑制有害细菌的增殖与活动,从而减少其对机体的不利影响。
↘ 中等强度的运动有效降低免疫过度激活和炎症
研究指出,高强度运动可能导致肠道紊乱并增加通透性;而中等强度运动则可通过促进肠道蠕动并增加有益微生物,积极改善肠道健康。
在一项为期八周的自发性高血压(SHR)运动训练研究中发现,运动训练可提高小肠上皮细胞中紧密连接蛋白表达并降低肠道通透性,从而改善肠道屏障结构。这些改变可最大限度减少肠壁损伤与渗漏,限制有害物质进入循环,进而降低免疫系统过度激活与炎症反应,促进运动训练的降血压效果。
不同运动的潜在机制会诱导肠道微生物群的变化
编辑
doi: 10.1080/19490976.2024.2404141.
适当的锻炼能促进胆汁酸(BA)的产生,缩短肠道通过时间,促进肌脉的释放,从而促进健康的肠道微生物群的形成。然而,过度运动可能导致严重的热应激,减少肠道血流,促进氧化应激,并激活HPA轴,最终导致微生物群失调。
微生物组重塑与免疫调节:益生菌增多、相关炎症减轻
↘ 运动增加双歧杆菌和乳杆菌有益于免疫,促进抗炎细胞因子分泌
在高血压模型中,运动训练能够减少与高血压相关的微生物种类丰度,同时增加支持正常血压的微生物种类。具体而言,运动训练提高双歧杆菌(Bifidobacterium)和乳酸杆菌(Lactobacillus)水平,并降低螺旋杆菌(Helicobacter)。
作为关键益生菌,双歧杆菌与宿主免疫调节密切相关:其可抑制Th2和Th17细胞分化,并促进抗炎细胞因子(如白介素-27和干扰素β)的表达。
因此,通过运动训练提升肠道内双歧杆菌的丰度,可能有助于缓解炎症并调节高血压相关的血压变化。
注:尽管现有研究已揭示肠道微生物群失调、免疫激活与高血压之间的关联,以及运动训练通过保护肠道健康改善高血压的潜在机制,但鉴于人类肠道微生物群组成、免疫反应与环境影响因素相较动物模型更为复杂,仍需进一步研究。
运动调节肠道微生物群和修复肠道屏障来改善血压
编辑
doi: 10.1080/10641963.2025.2608905.
肠脑轴是连接消化道与中枢神经系统的复杂双向通讯网络,借助神经、激素与免疫信号共同调控机体功能。
PVN小胶质激活致交感增强诱发神经炎症
在下丘脑室旁核(PVN)中,高血压相关信号可被感知并经中枢通路传递,从而增强交感神经活动。该过程伴随PVN内小胶质细胞激活:小胶质细胞被激活后诱发神经炎症,并进一步提升对肠道的交感信号输出。
编辑
doi: 10.1080/10641963.2025.2608905.
值得注意的是,这种交感增强与炎症状态密切耦合;炎症可反过来影响肠道微生物群组成,并改变肠道通透性,可能形成“中枢炎症—肠道稳态失衡—再反馈”的病理路径。
调整肠道菌群缓解肠脑轴交感亢进
运动训练有助于调节肠道微生物群的平衡,而肠道微生物群又通过自主神经系统影响肠脑轴的功能,而自主神经系统对管理高血压至关重要。
↘ 运动与粪菌移植可调节肠道微生物群,缓解神经炎症,从而影响血压
研究人员将经过运动训练的自发性高血压(SHR)小鼠粪便微生物群(FMT)移植到未接受运动训练的人群中。FMT显著降低了运动训练SHR中的交感神经活动,并改善了下丘脑PVN小胶质细胞激活,从而缓解了神经炎症。
通过胃囊输送了受体SHR大鼠的粪便样本。比较分析显示,受体SHR大鼠的小胶质细胞数量和大小显著增加。这种小胶质细胞活动的增加减弱了神经元活动,从而减少了交感神经活动。这些发现表明FMT改善了高血压中肠脑轴功能受损,突显了肠道微生物群在血管功能障碍和高血压中的作用。
SCFAs跨血脑调控肾素-血管紧张素系统
肠道微生物可通过发酵膳食纤维产生短链脂肪酸(如乙酸盐、丙酸盐和丁酸盐)。这些代谢物不仅为肠道上皮细胞提供能量,还能穿过血脑屏障并直接影响中枢相关区域。
编辑
影响因子:3.707
有研究进一步发现,SCFAs在脑内可调节G蛋白偶联受体(GPCRs),例如GPR41与GPR43的活性,并通过抑制肾素-血管紧张素系统(RAS)来减少血管炎症。
微生物群-肠道-大脑轴
编辑
doi: 10.3389/fnins.2023.1302957.
短链脂肪酸(SCFAs)作为肠脑轴关键信号分子,可通过调节神经递导与炎症反应积极改善心血管健康;同时,微生物群—大脑功能—行为之间的复杂联系也可能由微生物产生的神经活性物质(如多巴胺、5-羟色胺)介导。
肠菌产生5-羟色氨影响血压
除短链脂肪酸(SCFAs)外,肠道微生物还可通过合成神经递质前体,直接或间接调节中枢神经系统兴奋性。部分菌株参与5-羟色氨酸(一种血清素前体)的合成;另一些菌株则参与色氨酸代谢,从而调控色氨酸与5-羟色胺水平。
↘ 运动调节肠道菌群并可影响5-羟色胺水平
有氧运动训练可调节5-羟色氨酸/5-羟色胺相关水平:乳酸乳球菌(Lactococcus lactis)、植物乳杆菌(Lactobacillus plantarum)、嗜热链球菌(Streptococcus thermophile)、摩根氏菌(Morganella morganii)、肺炎克雷伯菌(Klebsiella pneumoniae)等菌群可与血清素合成相关;其中能够产生5-羟色胺的细菌(尤其乳酸杆菌属)可能随有氧训练促进的微生物多样性增加而上调。
因而,有氧运动可能通过提高与5-羟色胺生成相关的有益菌株丰度,对高血压调控产生积极影响。
综上所述,高血压、肠道健康与运动三者之间并非孤立存在,而是通过”菌群—代谢—免疫—神经“多重通路紧密交织、相互制衡的有机整体。一方面,高血压状态会引发肠道紧密连接蛋白表达异常、肠黏膜通透性增加及菌群结构失调,形成”肠漏—炎症—血压升高“的恶性循环;高盐饮食等诱因进一步加剧厚壁菌门/拟杆菌门比值异常,推动盐敏感性高血压的发生。
另一方面,中等强度运动能够帮助恢复肠绒毛结构、上调紧密连接蛋白、重塑菌群组成,经由短链脂肪酸、脂多糖、氧化三甲胺及胆汁酸四条核心代谢通路参与血压调控;同时通过富集双歧杆菌、乳杆菌等有益菌优化免疫反应,抑制 Th17 介导的血管炎症与 T 细胞过度活化,并借助肠—脑轴双向通讯缓解下丘脑室旁核(PVN)小胶质细胞激活所致的交感亢进与神经炎症。
由此可见,肠道菌群是连接运动与血压改善的关键”中介枢纽”:运动以肠道微生态为支点,撬动了从局部屏障修复到中枢神经调控的层层降压效应。
基于这一“肠—免疫—脑—血管”多维调控网络,以肠道菌群为干预靶点的非药物防治策略展现出可观的未来治疗可行性:
• 运动处方精准化:依据个体菌群特征(如产SCFA 菌丰度、F/B 比值、LPS 水平)定制运动类型、强度与周期,有望实现“菌群分型—运动匹配”的个性化血压管理,避免高强度运动反而加重肠道紊乱的风险。
• 菌群定向干预:粪菌移植(FMT)、特定益生菌(如双歧杆菌、乳杆菌)与益生元的补充,可承接运动对菌群的重塑效应,为无法耐受运动或运动效果有限的人群提供替代或协同路径——研究已证实,运动训练的粪菌移植可显著降低交感神经活动并缓解神经炎症,为”菌群治疗”提供了直接证据。
• 代谢物靶向调控:针对 SCFAs、TMAO、胆汁酸等关键代谢物的药物或营养干预,可在通路层面精准干预血压调控节点,弥补单纯生活方式干预的不足。
• 肠脑轴干预:通过调节菌群来源的 5-羟色胺、多巴胺等神经活性物质及 SCFAs 跨血脑屏障对肾素—血管紧张素系统(RAS)的抑制,有望从中枢层面打破”中枢炎症—肠道失衡—交感亢进”的病理反馈环。
需要指出的是,现有证据多来自动物模型与短期人群干预;而在人类中,肠道菌群组成、免疫反应及环境因素更为复杂,运动影响菌群与血压的具体分子机制仍待进一步阐明。未来研究应在更大样本、多中心、长随访的人群队列中验证运动—菌群—血压之间的因果关系,厘清不同运动模式(耐力、阻力、有氧)对菌群代谢谱的差异化作用,并探索在菌群分型基础上制定精准运动处方,及益生菌/FMT与运动的联合干预方案。随着机制研究深化与转化医学推进,“以动调菌、以菌调压”有望成为高血压综合管理中兼具可操作性、安全性与长期获益的重要防治范式,为这一全球性慢病防控提供新路径。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Zhao M, Liu Q, Shi NJ, Li Y, Li HB. Gut microbiota and hypertension: role of exercise training. Clin Exp Hypertens. 2026 Dec 31;48(1):2608905.
Gao C, Wei J, Lu C, Wang L, Dong D, Sun M. A new perspective in intestinal microecology: lifting the veil of exercise regulation of cardiometabolic diseases. Gut Microbes. 2024 Jan-Dec;16(1):2404141.
Hintikka JE, Ahtiainen JP, Permi P, Jalkanen S, Lehtonen M, Pekkala S. Aerobic exercise training and gut microbiome-associated metabolic shifts in women with overweight: a multi-omic study. Sci Rep. 2023 Jul 11;13(1):11228.
Grylls A, Seidler K, Neil J. Link between microbiota and hypertension: Focus on LPS/TLR4 pathway in endothelial dysfunction and vascular inflammation, and therapeutic implication of probiotics. Biomed Pharmacother. 2021 May;137:111334.
El Hage R, Al-Arawe N, Hinterseher I. The Role of the Gut Microbiome and Trimethylamine Oxide in Atherosclerosis and Age-Related Disease. Int J Mol Sci. 2023 Jan 25;24(3):2399.
Li H, Xu M, Xu X, Tang Y, Jiang H, Li L, Xia W, Cui N, Bai J, Dai Z, et al. Faecalibacterium prausnitzii Attenuates CKD via butyrate-renal GPR43 axis. Circ Res. 2022;131:e120–e34.
Yang T, Li H, Oliveira A, Goel R, Richards E, Pepine C, Raizada M. Transcriptomic signature of gut microbiome-contacting cells in colon of spontaneously hypertensive rats. Physiol Genomics. 2020;52:121–132.
谷禾健康
你有没有想过,亲吻一个人之后,你们交换的并不只是唾液、体温、情绪和暧昧,还有微生物。
微生物借着一次拥抱、一次深吻、一次共餐,在两个身体之间悄悄迁徙。它们不写情书,不发消息,不留下聊天记录,却可能比你更诚实地记得:你曾经和谁靠近过。
我们通常以为,身体是属于自己的。皮肤像一道边界,把我和世界分开。皮肤里面是我,皮肤外面是别人,是房间,是城市,是社会。
但微生物组研究正在告诉我们:这道边界可能没有想象中那么坚硬。
在我们的肠道、皮肤、口腔和呼吸道里,生活着庞大的微生物群。它们参与消化,调节免疫,影响营养吸收,也可能通过肠-脑轴影响情绪、压力反应和心理健康。更重要的是,这些微生物在某种意义上,“活”在我们的关系里、家庭里、城市里、制度里、时代里。
也就是说,身体并不是一个静止的内部世界,而是一场持续发生的交换。这种关于生命的理解,其实并不陌生。
《道德经》里讲:“万物负阴而抱阳,冲气以为和”,生命从来不是孤立的,而是在对立、流动、交换与平衡之中暂时成形。
现代科学正在从另一个角度靠近这个古老判断:食物、水、空气、家庭、伴侣、宠物、办公室、饮食、压力、城市环境、污染、孤独,甚至社会阶层,都可能参与塑造身体里的微生态。
本文借助微生物组这个窗口,重新理解身体与社会之间隐秘而深刻的连接:我们如何被关系塑造,如何被压力改变,如何被城市驯化,又如何把社会处境慢慢写进身体,在时代的洪流里,集体性的焦虑、速度、孤独与失衡,最终如何落实为一个人身体里的压力反应、免疫波动和微生态改变。
本文目录
01|家庭:血缘之外的继承
出生:身体不是一张白纸
家庭:一个微生物共同体
情绪:身体会记住家的温度
生活方式:餐桌、清洁与身体节律
宠物:家里的另一种微生物入口
02|亲密关系:身体记得谁靠近过
接吻:亲密是一场微生物迁徙
同居:菌株共享比血缘更有力量?
关系变化:结婚、分开与微生态重组
关系质量:安全感不抽象,它有身体回声
03|社交网络:微生物如何在人群中流动
接触:握手、拥抱与共享空间
社交位置不同,微生物暴露也不同
疫情改变的不只是病毒传播
04|孤独与压力
支持性互动 vs 压力性互动
社会支持:不只是安慰,也是一种生理缓冲
慢性压力:如何从关系进入肠道
从乳杆菌到犬尿氨酸:压力的代谢痕迹
肠道菌群反过来影响行为
05|城市:现代生活如何改变微生物暴露
城市是身体的外部生态
室内化生活,离土壤越来越远
绿地:城市里的微生物入口
06|健康选择,也需要现实条件的支持
不同生活条件,会进入菌群结构
健康建议,也要落到现实里
公共条件,也在塑造身体微生态
文化也会塑造身体边界
07|结语:健康不是控制身体,而是重建共生
从微生物组的角度看,一个人出生的那一刻,已经进入了一张看不见的交换网络。
母亲的身体、分娩方式、喂养方式、家庭成员的触摸、房间里的空气、餐桌上的食物,都会参与塑造一个婴儿最早的身体生态。
出生:身体不是一张白纸
我们最早继承的,除了基因、姓氏、长相、血缘,也包括一套看不见的微生物命运。
新生儿与母亲之间存在明显的肠道微生物相似性,这可能与分娩过程和母乳喂养中的微生物传递有关。顺产婴儿更容易获得类似母体阴道菌群的微生物,而剖宫产婴儿则更容易呈现类似皮肤来源的微生物特征;喂养方式同样会影响婴儿早期肠道微生物的建立。
3个月大时,剖宫产婴儿的双歧杆菌和拟杆菌(均为p < 0.05)较低,潜在病原体更多,且成分差异持续至12个月,可能增加疾病风险。
注:这个还是要根据每位妊娠期女性相应的身体状况自行选择,没有一种出生方式能够被简单地道德化,也没有一种喂养方式应该被贴上优劣标签。
这让我们看见一个更深的事实:所谓“我”,从一开始就与另一个身体、一个家庭发生着密切关系。
家庭:一个微生物共同体
共同生活的人,会共享空间、食物、空气、物品、作息、卫生习惯、身体接触。一个家庭有自己的餐桌,有自己的味道,有自己的清洁方式,有自己的睡眠节奏。久而久之,这些东西都会参与塑造家庭成员的身体生态。
我们常说,一个人身上有家里的影子。
过去,这句话多半是在说性格、口音、饮食偏好,或者处理亲密关系的方式。但现在,我们或许可以把它理解得更具体一点:一个人身上,也可能带着家庭的微生物痕迹。
兄弟姐妹之间也会表现出更高的微生物相似性,这可能与共同生活环境、相似的生活方式和遗传因素有关。也就是说,一个家庭内部可能逐渐形成某种独特的家族微生物谱系——不只是血缘上的家族,也是微生物意义上的家族。家庭成员,包括母亲之外的其他人,也可能把某些细菌传递给孩子,参与儿童微生物组的形成。
这也是我们在检测实践中发现,家庭成员之间的肠道微生态相似度比较高。
一个人从小吃惯的饭菜,家里是否经常开窗,父母是否爱干净到近乎焦虑,家中有没有宠物,家庭成员之间是亲密、松弛,还是长期充满争吵、沉默和压抑,这些都不只是记忆的一部分。它们可能通过饮食、压力、免疫、接触、日常行为,慢慢进入身体,成为一个人最早的生态底色。
情绪:身体会记住家的温度
家里的气氛,不只影响一个孩子的性格,也会影响他的身体节律。
长期被回应、被安抚、被稳定照料的孩子,身体更容易建立一种基本的安全感,更少的慢性压力,也更容易形成健康行为。而长期冲突、忽视和不可预测,则会让身体更早进入警觉状态。
这种警觉不止停留在性格里,它会通过应激系统进入身体,HPA 轴、皮质醇、免疫炎症反应,都可能改变肠道微环境,进而影响微生物组。
所以,家的温度不只停留在记忆里。
心理学常说,早年关系会塑造一个人的依恋模式;微生物组研究则让这个判断多了一层身体维度。家庭并不只是塑造一个人如何理解关系,也可能参与塑造他身体内部的生态环境。微生物组,或许正是身体保存早年情绪的隐秘方式之一。
生活方式:餐桌、清洁与身体节律
如果说家庭的情绪影响身体如何应对世界,那么日常生活方式,则更直接地塑造着微生物组。
其中最重要的入口,是餐桌。
餐桌不只是提供热量,也在给肠道微生物提供不同的生态条件。饮食偏好对肠道微生物组的形成尤其有影响。长期摄入营养结构更合理的食物,与更高的微生物α 多样性和代谢通路有关,也会改变某些与人体营养和健康相关的共生功能。
一个家庭长期吃高纤维、多样化、富含天然食材的食物,和长期依赖高糖、高脂、高盐、低纤维的加工食品,肠道里的微生物会面对不同的资源环境。它们的组成、功能和代谢方向,也会随之改变。
但家庭生活方式并不只包括餐桌。
家庭成员往往会共享相似的卫生习惯,并使用相同或类似的卫生产品。这些习惯可能影响皮肤微生物群,进而影响皮肤健康。
洗澡频率、沐浴露、洗发水、肥皂、洗衣液的选择、清洁剂的使用、衣物清洗方式、居住空间的通风与湿度,都可能改变皮肤表面的微生物环境。
运动也是重要变量。
运动可能增加肠道菌群多样性,并改善拟杆菌门/厚壁菌门比例。这一比例常被用于观察肠道菌群结构与体重、肥胖相关病理状态和胃肠健康之间的关系。运动还可能促进某些有益微生物的生长,增强黏膜免疫,并支持产生对胃肠道具有保护作用的代谢产物。
吸烟、饮酒、药物使用等成瘾性行为,也可能影响微生物组。
宠物:家里的另一种微生物入口
养宠物的家庭,往往会与宠物发生更多微生物共享。
尤其是在有婴幼儿的家庭中,宠物暴露可能增加某些与儿童肥胖和过敏性疾病呈负相关的细菌丰度;孕期和生命早期接触宠物,也与婴儿肠道微生物组的某些有益变化有关。
宠物暴露还具有双重效应
它可能增加微生物多样性,给家庭成员带来更丰富的微生物接触。
一只狗每天出门,接触草地、泥土、空气、其他动物和城市角落;它回到家里时,带回来的不只是气味和脚印,也包括一部分外部环境中的微生物。对一个越来越封闭、越来越清洁、越来越室内化的现代家庭来说,宠物有时像一个小型的自然入口。
另一方面,它也可能引入潜在病原体,增加某些健康风险。
有研究报告称,与宠物狗共同生活的女性,其样本中与尿路感染相关的致病性大肠杆菌的水平可能更高。
还有研究表明,母亲孕期接触狗,与男性后代 ADHD 风险之间存在正相关,这一现象仍需要进一步研究解释。
这正是微生物组研究有意思的地方:它很少给出简单的道德结论。
家庭从来不是一个封闭系统。人、动物、食物、空气、地板、沙发、床、户外环境,共同构成了一个流动的微生态网络。在这个网络里,宠物是一种特殊的参与者。它们把外面的世界带进家里,也把家庭成员暴露在一种更复杂的微生物交换之中。
家庭不是命运的全部,却是身体最早的生态现场。在这里,微生物被传递,菌群在共同生活中趋近;饮食、清洁、睡眠、运动、情绪被一遍遍重复,成为身体最初的秩序。一个人带着这些看不见的微生物印记,走向后来更复杂的亲密关系、城市生活与社会世界。
长大之后,我们会进入新的关系,和新的身体靠近,和新的生活空间重叠。从微生物组的角度看,它们也是身体的微生态事件。
接吻:亲密是一场微生物迁徙
亲密关系最直观的微生物入口,是身体接触。
拥抱、握手、亲吻、共餐、共用杯子、共享床铺和浴室,都会让两个身体之间发生微生物交换。深吻这样的亲密行为会带来明显的口腔微生物群趋同,而且接触时间越长,这种趋同可能越明显。
这并不意味着亲吻是危险的,更准确地说,亲密关系让身体的边界变得更开放。两个原本独立的微生态系统,因为接触、共处和重复生活,开始发生某种程度的重叠。
亲密关系不只是心理上的靠近,也是一种生物学意义上的靠近。
同居:菌株共享比血缘更有力量?
如果说接吻是瞬间的微生物迁徙,那么同居就是长期的微生态共处。
研究表明,同居夫妻或情侣,尤其是关系深厚的同居者,其微生物组比单身人士更为多样化。
同居对菌株共享的影响,可能比遗传或年龄更强。也就是说,两个没有血缘关系的人,只要长期生活在同一个空间里,也可能在微生物菌株层面变得更加相似。
编辑
883名同居者中,多数家庭内菌株共享率显著高于非同居者。家庭内共享率达11%–71%。
一个人做饭,另一个人吃;一个人养成夜宵习惯,另一个人也被带进去;一个人爱开窗,另一个人随之暴露在相同的室内外微生物环境中。久而久之,两个人的身体不只是适应彼此的脾气,也适应彼此的微生态。
关系变化:结婚、分开与微生态重组
亲密关系并不是静止的。结婚、同居、搬家、生育、分手、离婚,都会改变一个人的日常环境和微生物暴露。
编辑
婚姻或与伴侣同住可能因为共享生活空间和同步生活方式,增加微生物共享;
而一段关系的结束,则可能减少这种共享。
两个人分开之后,共同建立的一套生态会被拆散。一个人重新独居,重新安排饮食、睡眠和空间,也重新面对压力。
压力与微生物多样性下降有关;
抑郁与肠道微生物丰富度降低之间也存在相关。
关系破裂通常伴随独居、压力和抑郁情绪,因此可能进一步影响微生物组。
失去一个亲密的人,失去的不只是陪伴,也可能是共同餐桌、共同作息、共同空间和共同微生物暴露。身体需要重新适应一个人的生活,重新建立自己的节律。这就是为什么有些关系结束后,人会明显感到身体也变了。
微生物组提供了一个重要视角:关系变化会通过压力、饮食、睡眠和环境接触,进入身体内部。
关系质量:安全感不抽象,它有身体回声
一段支持性的关系,可能降低压力,帮助人维持更稳定的生活方式;一段长期冲突、冷漠、控制或不可预测的关系,则可能让身体长期处于应激状态。
编辑
社会连接可以增强肠道微生物多样性,并稳定其组成;动物研究还发现,社会连接与肠道微生物多样性之间可能存在双向调节关系。
某些特定细菌,例如 粪肠球菌(Enterococcus faecalis),可能通过抑制 HPA 轴过度激活,影响相关脑区神经活动,从而参与社会行为调节。
关系影响压力,压力改变肠道环境,肠道微生物又可能通过免疫、代谢和神经信号影响情绪和行为。
好的关系可能让身体更容易放松,让压力轴不过度紧绷,让饮食和睡眠更稳定,也让微生物组拥有更稳定的内部环境。
关系不是固定不变的。它始终是流动的、需要辨认和调整的。
这是一种对身体和生活秩序的保护。
和谁靠近、同住、共餐、接吻,会改变我们交换微生物的方式;一段关系是支持还是消耗,也会通过压力、睡眠、饮食和免疫反应,改变身体内部环境。
但亲密关系只是社会生活中最贴近身体的一层。再往外看,朋友、同事、邻居、办公室、学校和社区,同样构成了微生物交换的网络。
握手、拥抱、共餐、聊天,使用同一张会议桌,触碰同一个门把手,在同一间办公室里呼吸…
从微生物组角度看,这也是一张看不见的交换网络。人群传播的不只是信息、情绪和观念,也可能传播微生物。
接触:握手、拥抱与共享空间
社交网络影响微生物组,最直接的方式,是身体接触和空间共享。
拥抱、握手,都可以成为微生物传递的通道。除此之外,共用餐具、办公桌、设备、门把手、公共空间,也可能促进不同个体之间的微生物共享。尤其是办公室这样的室内环境,人和空间之间的微生物转移会受到多种因素影响。
一次握手,是礼貌,也是一种微生物接触;
一次拥抱,是安慰,也是一种皮肤微生态的短暂重叠;
…
编辑
在真实生活里,边界一直在被打开:通过皮肤,通过空气,通过物品表面,也通过我们反复进入的空间。
社交位置不同,微生物暴露也不同
社交网络的密度、布局和关系距离,都会影响微生物交换。
更密集的网络,往往意味着更频繁的人际接触,因此可能带来更显著的微生物共享。在某些中心化网络中,处在核心位置的人,也可能因为连接更多人、参与更多互动,而经历更多微生物交换。
在社会传播中,中心人物可能传播消息、观点、情绪和流行趋势。
而在微生物组中,他也可能是一个微生物交通枢纽。
编辑
老师、医生、服务员、销售人员、管理者,或者一个社交极其活跃的人,每天接触的人更多,进入的空间更多,触碰的物品更多。他们不仅处在人际网络的中心,也可能处在微生物交换的高流量位置。
初步研究显示,社交活跃、社会互动更多、社交焦虑较低的人,可能拥有更高的皮肤微生物群多样性。这可能与他们通过人际接触获得更多新的微生物种类有关。
这并不是说社交越多,菌群就一定越好。微生物交换具有双重性:它可能增加多样性,也可能增加潜在病原体暴露。
微生物组研究让我们看到,身体并不只是生活在个人习惯里,也生活在人群结构里。
你站在什么样的社交位置,和多少人接触,进入多少空间,拥有怎样的互动频率,都会改变身体与微生物世界相遇的方式。
疫情改变的不只是病毒传播
社交网络既然会影响微生物传播,那么改变社交网络,也会改变微生物暴露。
公共卫生干预可以通过改变社交网络动力学,影响病原体传播。比如在疫情期间,口罩、远程办公、线上聚会等措施,有效减少了病毒传播。
从更广的微生物组视角看,它也改变了人们的握手、拥抱、共餐、通勤、办公室互动、学校生活和公共空间使用。许多人从高频线下社交,转向屏幕中的低接触生活;从办公室里的共享空间,转向家庭内部的封闭环境。
这种改变有公共卫生意义,也有微生态意义。当这套系统被改变,微生物的流动路径也会随之改变。
当然,疫情期间减少病原体传播是必要的。而长期隔离、过度消毒和极端回避接触,也可能让人失去某些正常的微生物暴露和社会支持。
公共卫生困难的地方在于,在风险控制、社会连接和微生态多样性之间,寻找更合理的平衡。
社交网络让我们看见,微生物组并不只属于个人身体。我们在人群中交换语言,也交换菌群;传播情绪,也传播微生物;建立关系,也建立一张看不见的生态网络。
但社交网络的另一面,是孤独。接下来要看的,是微生物组与现代人最熟悉的一种处境:孤独与压力。
我们的通讯录里有很多名字,群聊里有很多消息,朋友圈里有很多动态,每天都在回复、协作、点赞、开会、闲聊… 似乎从未真正离开人群。
但很多人依然觉得缺少稳定的支持、可依赖的关系、真实的回应、身体放松的安全感。
从微生物组的角度看,孤独、压力、社会支持通过神经内分泌、免疫炎症、饮食行为、睡眠节律和肠-脑轴,改变肠道微生物赖以生存的环境。
支持性互动 vs 压力性互动
在讨论孤独之前,我们先来看两种关系。
有些关系让人放松,让人觉得世界可以被信任;有些关系则让人长期警觉,让身体不断准备防御。前者可能成为压力的缓冲,后者则可能成为压力本身。
这也是为什么,孤独的反面不是热闹,而是支持。不是身边有多少人,而是有没有关系能让身体放松下来。
社会支持:不只是安慰,也是一种生理缓冲
人为什么需要关系?
一个常见答案是:因为人需要陪伴,需要被理解,需要情感支持。
但从身体角度看,社会支持不只是心理安慰,也会影响压力系统、免疫状态、饮食行为和微生物组。
研究指出,强社会网络和支持性关系可以改善心理健康,进而影响个体的生活方式选择。处在支持性社会环境中的人,更可能采取健康行为,包括均衡饮食和良好卫生习惯,而这些行为都可能有利于微生物生态。
情感支持和社会网络支持,也与更好的地中海饮食依从性相关;而这种饮食模式中的充足营养,有助于维持肠上皮屏障、支持黏膜免疫,并为微生物代谢提供营养来源,从而帮助维持肠道微生物组稳态。
换句话说,社会支持可能先影响一个人如何吃饭、如何照顾自己、如何应对压力,再进一步改变肠道微生物所处的生态条件。
编辑
慢性压力:如何从关系进入肠道
社会互动还可以通过影响免疫系统,间接影响微生物组成。
社会关系的质量,例如友谊或冲突,与C 反应蛋白(CRP)等系统性免疫生物标志物水平显著相关。
在压力状态下,大脑还会通过直接的激素和神经信号,进一步调节外周免疫介质的合成,例如 IL-18。这些炎症因子的波动可以改变肠道微环境,从而对人体微生物组产生实质性影响。
也就是说,关系中的冲突和压力,并不是抽象地让人难受。它可能通过免疫系统进入身体,再通过炎症信号改变肠道微生物生活的环境。
研究表明,强社会支持可以减弱与社会痛苦相关脑区的过度激活,包括背侧前扣带皮层(dACC)和布罗德曼 8 区(BA 8)。同时,它也有助于降低个体面对社会压力源时的皮质醇水平。
编辑
当社会压力被大脑识别,身体会启动下丘脑-垂体-肾上腺轴。HPA 轴被反复激活后,皮质醇、免疫反应和炎症状态都可能随之改变。而这些变化,最终会影响肠道环境和肠道微生物群的平衡。
从乳杆菌到犬尿氨酸:压力的代谢痕迹
压力会扰乱肠道微生物平衡,这一过程可能由肠-脑轴介导。慢性压力可以减少有益菌,例如乳杆菌,同时升高循环中的神经活性代谢物,例如犬尿氨酸;这些变化与后续行为改变有关。
恢复乳杆菌丰度,并纠正相关代谢通路的干预,可以逆转这些效应。
编辑
当然,这并不意味着所有压力问题都能被简化成补充乳杆菌就能解决,人的情绪、行为和社会处境远比单一菌群变化复杂。这里提供了一个重要窗口。
心理压力可能会被身体翻译成菌群和代谢变化;而这些变化,又可能进一步参与行为和情绪反应。
肠道菌群反过来影响行为
微生物组也可能反过来影响行为、情绪和社会互动。
研究显示,社会连接可以增强肠道微生物群多样性,并稳定其组成;这种变化还可能进一步反馈调节社会行为。原文特别提到,这种双向调节可能由某些特定细菌物种介导,例如粪肠球菌(Enterococcus faecalis)。
粪肠球菌可能通过抑制 HPA 轴的过度激活,下调相关脑区的神经活动,从而参与社会行为调节。
也就是说,社会行为、压力系统和微生物组之间,可能不是单向关系,而是一个相互调节的回路。
编辑
微生物组研究并不是在鼓励人盲目社交,也不是说越多人际接触越好。它提醒我们的是:人类需要链接,但这种链接最好有质量。
这里需要区分孤独和独处。
一个人可以独处而安定,也可以在人群里感到孤独。
孤独危险的地方在于当这种状态持续太久,孤独就会从心理经验,变成生理环境。它进入压力轴,免疫反应,肠道微生态,也进入一个人对世界的基本感受。
孤独和压力让我们看到,微生物组受到的不只是饮食影响,也受到社会关系的塑造。但关系并不是现代人压力的全部来源。通勤、办公环境、绿地缺失、加工食品、污染、噪音,以及城市生活持续的速度与竞争,同样在重塑我们的身体。当视角从人际关系进一步扩展到城市环境,一个新的问题出现了:城市,正在怎样重塑我们的微生物组?
如果说家庭和亲密关系改变的是人与人之间的微生物交换,那么城市改变的,则是人与环境之间的微生物关系。
城市是身体的外部生态
我们通常把城市理解为生活背景。它是房子、街道、地铁、写字楼、商场、学校、医院和便利店;是通勤路线,是外卖半径,是空气质量,是噪音,是绿化面积,也是一个人每天被迫适应的生活节奏。
编辑
从微生物组角度看,是一套外部生态系统。
城市化与微生物多样性下降有关,可能与加工食品摄入增加、污染物暴露、抗生素使用和久坐生活方式有关。工业化则进一步加剧这种趋势,因为农业实践中常使用抗生素和农药,而这些因素可能扰乱微生物生态。
城市,可能通过我们吃什么、吸入什么、接触什么、缺少什么,来改变身体里的微生物环境。
一个长期生活在城市中的人,接触最多的可能不是土壤、植物、动物和开放空气,而是建筑材料、空调系统、办公桌面、地铁扶手、消毒剂、塑料包装食品、汽车尾气、噪音、屏幕。
现代生活的微生物暴露,换了一种结构。我们并不是不接触微生物,而是更少接触自然环境中复杂、多样、共同演化的微生物。
室内化生活,离土壤越来越远
城市生活最明显的特征之一,是人的生活越来越室内化。
我们接触的是空调过滤后的空气、人工清洁过的地面、被消毒剂反复处理的桌面、长期封闭的房间和高度重复的人群流动。这样的环境当然减少了许多病原风险,但也可能减少了来自土壤、植物和自然空气的微生物多样性输入。
编辑
城市化与人体共生微生物多样性下降有关;尤其在生命早期,分枝杆菌(Mycobacteria)、乳杆菌等微生物暴露可能减少。这些变化可能影响免疫调节回路的正常发育,削弱调节性T细胞和调节性巨噬细胞的活性与功能,最终导致免疫失调。
这不是说这些微生物或生物暴露越多越好,也不是要回到低卫生水平的过去。
现代城市带来了清洁饮水、污水处理、医疗系统、疫苗、抗生素、食品供应和公共卫生,这是人类寿命延长的重要基础。城市让我们更安全,也让我们更单一。
早期生命需要与外部环境进行某种免疫训练。自然暴露减少,可能意味着身体少了一部分与世界共同训练免疫系统的机会。最好是在病原控制和生态多样性之间找到新的平衡。
“玩泥巴”也有利于健康?接触环境微生物群可能调节肠道菌群和免疫系统
绿地:城市里的微生物入口
在城市里,自然暴露并没有完全消失。公园、绿地、树木、草地、土壤、社区花园、河岸、户外活动等,仍然是城市居民接触环境微生物的重要入口。
研究显示,农村人群通常有更高的微生物多样性,这可能与传统饮食和更接近自然环境的互动有关。
“生物遗传学”假说表明,在自然环境中定期、间歇性接触空气中的生物化合物混合物,会抑制高度互联的PI3K/Akt/mTORC1信号通路。这抑制了相关的病理途径,有益于身心健康。
城市绿地并不等同于乡村自然。但它至少提供了一种补偿:在高度室内化、人工化、消毒化的城市生活中,绿地让身体重新接触到一部分外部生态复杂性。
编辑
从微生物组视角看,绿地的存在,也是城市居民接触环境微生物的重要界面。
环境污染物通过肠脑轴影响心理健康,精神益生菌或将发挥重要作用
城市不是微生物组问题的终点。
同一座城市里,有人靠近公园、绿地和新鲜食物;也有人长期暴露于高架桥、噪音、污染、加工食品、通勤和高压工作。
城市暴露从来不是平均分配的。于是,问题从城市如何塑造身体,进一步到了:不同阶层的人,究竟生活在怎样不同的微生物世界里?
微生物组不是只属于个人身体,不只关乎个人如何生活,它也关乎一个社会如何安排生活。
不同生活条件,会进入菌群结构
微生物组研究提醒我们,阶层也可能以更隐蔽的方式进入身体。
收入、教育和医疗可及性的差异,会影响微生物健康;尤其是童年时期的社会经济地位,可能对成年后的肠道微生物组成产生长期影响。研究显示,较低的父母教育水平和较低的当前社会经济地位,与拟杆菌属丰度降低有关。
拟杆菌属是人体肠道中非常重要的一类菌属,参与代谢、免疫和肠道屏障功能调节。它与克罗恩病和酒精性肝病等疾病存在密切关联。
吃什么,住哪里,睡多久,压力有多大,看病是否方便,是否有时间运动,是否有机会接触自然,是否从小就拥有稳定、安全、营养充足的生活环境。这些东西最终都可能在身体内部留下痕迹。
健康建议,也要落到现实里
我们常听到,要少吃糖,少吃油,多吃蔬菜,多吃全谷物,多运动,少熬夜,保持自律…这些建议本身没有错。
问题在于,它们默认每个人都拥有同等质量的选择条件。
事实上,不是每个家庭都有时间计划饮食、做饭、储存食材、研究营养搭配等。
这也是为什么把健康完全解释为个人自律,是不够完整的。
个人选择很重要,但选择本身也需要条件。一个人能否长期吃得更好、睡得更稳、动得更多、少滥用抗生素、及时获得医疗帮助,并不只取决于意志力,也取决于他所处的生活结构。
公共条件,也在塑造身体微生态
卫生、住房和抗生素管理的政策,在塑造微生物生态系统中发挥作用。
例如,过度拥挤的住房增加了病原体传播风险,减少了接触多种环境微生物的次数,从而破坏微生物的稳态。更大的城市绿地促进了全年接触环境微生物群,这有利于健康。
抗生素过度使用通常在无节制获取或调控不佳的人群中更为常见,已被证明会减少有益微生物,并导致抗生素耐药菌株的出现。
此外,突发的经济危机还可能影响弱势群体的身心健康,从而激活慢性压力通路,并通过神经内分泌免疫轴对微生物稳态产生不利影响。
好的公共条件,可以让健康选择变得更容易。
这些都会在无形中改变一个人每天面对的选择质量。
文化也会塑造身体边界
文化看起来像观念、习俗和礼貌,但从微生物组角度看,它也是一套规定身体如何接触世界的规则:我们如何吃饭,是否共餐,是否共住,如何拥抱,是否握手,如何清洁,如何理解干净等。
编辑
围绕卫生、食物准备和身体接触的文化实践,会影响微生物共享和传播模式。在集体主义文化中,共同进餐和共享居住空间更常见,微生物交换可能高于更强调个体边界的社会。
这并不是说哪一种文化更好。
更多微生物交换,可能意味着更多样的暴露,也可能带来更高的病原传播风险;更强的个人边界,可能降低某些感染风险,也可能减少一部分日常微生物接触。
未来的微生物组研究和健康干预,也不能脱离文化语境。需要进行跨文化比较,研究不同文化规范如何影响微生物传播和多样性。
以上的讨论,并不是要否定个人努力,而是可以更友好地理解自己和他人:健康行为的形成,往往受到食物可及性、居住环境、工作时间、医疗资源、健康素养和社会支持等因素共同影响。
这并不意味着命运被环境决定。健康不是一场完美主义竞赛,不是责备一个人为什么没有立刻做到最好,而是帮助他找到在当下条件里最可行的一步。而微生物组,正是一个仍然可被调整、可被重新塑造的入口。
微生物组的意义,就在于它让我们同时看见这两件事:一方面,生活环境确实会进入身体;另一方面,身体仍然保留着被重新照顾、重新调整、重新建立平衡的可能。
健康不是控制身体,而是重建共生
写到最后,微生物组改变的,或许不止于我们对细菌这个维度的看法,而是我们对健康的理解。
过去,我们常把健康理解成一种控制能力:
编辑
于是,健康很容易变成一场紧张的自我管理:吃得够不够干净,睡得够不够早,运动够不够多,菌群够不够好。但微生物组提醒我们,生命并不是靠绝对控制维持自身的。
一个健康的身体,不是没有压力、没有情绪波动、没有外界环境影响的身体。恰恰相反,它是一个能够与无数微生物、食物、关系、环境和变化不断协同,并在其中维持动态平衡的开放系统。
那么,什么是我们值得追求的?
也许不是把身体打造成一个精密控制的运作机器,而是让它成为一个更有韧性的生态系统。
照护身体,放下焦虑,不必把每一次饮食失控、熬夜都理解成失败;不再把身体当成敌人,不再把健康变成对自己的审判。
编辑
微生物组的可塑性告诉我们,它会被压力扰动,也能够被稳定的节律修复;会被加工食品影响,也能够被更好的饮食慢慢调整;会被孤独消耗,也能够在支持性的关系里重新获得缓冲。
从这个角度看,照护微生物组,并不是简单地执行某一套饮食法,它更接近一种生活方式的重建,让日常生活重新出现可以恢复生机的空间:吃得更丰富一点,睡得更稳定一点,找合适自己的补剂,多接触自然,给压力出口,也对长期内耗的关系按下暂停,让身体少一点无谓的防御。
一个更健康的社会,也应该让健康选择变得更容易发生:让新鲜食物更可及,人们拥有更多健康食物或营养补剂的选择,城市保留适当的绿化,科学的医疗和健康知识更容易抵达普通人,人们拥有被支持、被理解、被照护的现实条件。
观察菌群的变化,是在理解它的变化之后,建立一种更松弛的安全感:知道哪里可以调整,哪里需要等待,通过更稳定的节律、食物、理想的关系、友善的生活环境,慢慢把身体带回平衡。
最终,微生物组告诉我们的,也许不只是科学事实,而是一种更谦卑的生命智慧:人不是孤岛,身体也不是孤城。我们活在万物之中,也被万物塑造。
健康,更像是一门共处的艺术:与体内无数微小生命共处,与自己的脆弱和限制共处,与他人、城市、自然和时代共处。
健康,也是一种活得更有弹性,更有连接,更能在复杂的世界里保留恢复平衡的能力。
主要参考文献
Li J, Yang Y, Wang Y, et al. Society and the Microbiome: A Biopsychosocial Window Into Comprehensive Well‐Being: A Review[J]. Health Science Reports, 2026, 9(5): e72162.
Song Y, Maley A, Boyineni J, et al. Effects of co-housing and social isolation on the gut microbiota[J]. Physiology & Behavior, 2025, 299: 114980.
Marin, I., Goertz, J., Ren, T. et al. Microbiota alteration is associated with the development of stress-induced despair behavior. Sci Rep 7, 43859 (2017).
Wu, WL., Adame, M.D., Liou, CW. et al. Microbiota regulate social behaviour via stress response neurons in the brain. Nature 595, 409–414 (2021).
Bashan, A., Gibson, T., Friedman, J. et al. Universality of human microbial dynamics. Nature 534, 259–262 (2016).
Fan J, Zhou Y, Meng R, et al. Cross-talks between gut microbiota and tobacco smoking: a two-sample Mendelian randomization study[J]. BMC medicine, 2023, 21(1): 163.
谷禾健康
记忆力下降、反应变慢、注意力不集中、认知功能减退等问题,正在受到越来越多关注。
尤其是在新冠疫情之后,脑雾、记忆力下降、疲劳和注意力减退等认知相关症状影响了更多人群,也让大脑健康不再只是老年人的话题。
大脑衰老不仅会带来记忆和反应能力下降,还会增加阿尔茨海默病、帕金森病等神经退行性疾病的发生风险。随着认知功能逐渐受损,一个人的学习能力、工作效率、生活质量,甚至独立生活能力都可能受到影响。
以往谷禾写过:大脑退行疾病的两个重要诱因:氧化应激和肠道失衡,人的脑部大约有860亿个神经元和数万亿个突触连接,由250-300亿的神经胶质细胞支持,消耗基础氧气中约20%的比例来维持ATP驱动的活动。
这种高代谢特征,也让大脑更容易产生大量活性氧,也就是ROS。同时相比其他组织,大脑的抗氧化防御系统相对较弱。一旦ROS水平长期超过抗氧化系统的清除能力,就可能出现氧化还原稳态紊乱,形成氧化应激。
氧化应激会损伤细胞结构,干扰能量代谢和神经信号传递,也是多种神经系统疾病的重要病理基础。
可以说,大脑是一个高度耗能、也高度脆弱的器官。
过去,人们更多把神经退行性疾病理解为神经系统内部的问题,而相对忽略了外周器官,尤其是肠道,对大脑功能的长期影响。现在,越来越多证据显示,肠道和大脑之间存在一条复杂的双向通讯网络,也就是微生物群-肠-脑轴。
这条通路并不是单一机制,而是通过神经、代谢、免疫和内分泌等多种方式,把肠道微生态状态与大脑功能紧密连接起来。
肠道菌群可以通过自身代谢产物或次生代谢产物,影响氧化应激、系统性炎症、能量代谢、血脑屏障、神经递质和应激反应,进而参与大脑衰老和认知功能变化。
本文将从机制到干预,系统梳理肠道菌群如何影响大脑衰老:包括微生物群-肠-脑轴的核心通路、可能加速认知衰退的风险菌、支持认知健康的有益菌,全面总结包括饮食、生活方式和精准微生态管理等干预策略,希望为关注脑健康的专业人士和大众提供科学、前沿、实用的知识框架。
如果说过去对大脑衰老的理解更多集中在中枢神经系统内部,例如神经元损伤、突触丢失、小胶质细胞活化、Aβ相关蛋白病理,那么近年的研究正在把视角进一步前移:大脑衰老并不只是脑内事件,它与肠道微生态、外周免疫、代谢信号和神经内分泌网络密切相关。
肠道微生物群与中枢神经系统之间的双向通讯网络是理解肠道菌群如何影响大脑衰老的基础。
编辑
doi.org/10.1007/978-981-99-8803-7
接下来,我们将从神经通路、代谢通路、免疫通路和内分泌通路四个层面,梳理肠道菌群如何影响血脑屏障、神经炎症、海马功能和认知表现。
神 经 通 路
迷走神经把肠道状态传给大脑
在微生物群-肠-脑轴中,迷走神经是一条非常重要的神经通路。
迷走神经如何把肠道信号传给大脑?
迷走神经是人体最长的脑神经之一,其中约80%的纤维属于传入纤维。
它可以把来自胃肠道的机械刺激、化学信号、免疫状态和代谢变化,传递到脑干孤束核,再进一步影响海马、杏仁核、下丘脑、前额叶皮层等脑区。
编辑
doi.org/10.1007/978-981-99-8803-7
这些脑区分别与记忆、情绪、压力、执行功能有关。因此,当肠道菌群失衡影响迷走神经信号时,最终可能反映为认知表现、睡眠状态、情绪稳定性和压力应答能力的变化。
肠道菌群不是直接发消息,而是先改变肠道信号环境
肠道菌群产生或调节的多种代谢物,包括:短链脂肪酸、胆汁酸、色氨酸代谢物和微量胺类物质等,首先影响的是肠道局部环境,包括肠上皮细胞、肠嗜铬细胞、肠神经系统和免疫细胞。随后,这些局部变化再通过迷走神经、内分泌信号和免疫炎症信号传递到中枢神经系统。
也就是说,肠道菌群先改变肠道内部环境,再通过迷走神经把这些变化翻译成大脑能够识别的信号。
★ 5-羟色胺
——肠道产生,但主要通过信号通路影响大脑
人体外周约90%的5-羟色胺(简写5-HT)由肠道肠嗜铬细胞合成,但肠源性5-HT通常不能大量直接穿过血脑屏障。
因此,肠道5-HT对脑功能的影响,更多是通过调节肠神经系统、迷走神经活性、免疫细胞和内分泌信号间接实现。
已有研究显示,部分共生菌能够促进肠嗜铬细胞释放5-HT,并改变肠道神经活动和胃肠动力。
肠道产生的5-羟色胺通常不能大量直接穿过血脑屏障。因此,它对脑功能的影响,并不等同于“肠道5-羟色胺直接进入大脑”。它主要通过激活肠神经系统、迷走神经传入纤维、免疫细胞和内分泌信号,间接影响脑内神经活动、情绪调节和认知过程。
★ GABA和多巴胺
——更多是间接影响神经信号
除了5-HT,肠道菌群还可能影响GABA、多巴胺等神经递质相关通路。
GABA 能帮助大脑放松。部分乳酸菌和双歧杆菌具有谷氨酸脱羧酶系统,可能参与GABA相关代谢。
比如植物乳杆菌 PS128,被认为是一种有潜力的精神益生菌,能改善情绪和运动功能。
注:目前仍然缺乏脑脊液检测等严格的临床数据来证明这种直接的转化关系。
多巴胺,是大脑的快乐与动力分子,一些肠道细菌也可以影响酪氨酸、苯丙氨酸等芳香族氨基酸代谢,并产生酪胺、苯乙胺等微量胺类物质。
这些代谢物可以作用于微量胺相关受体,例如TAAR家族受体,从而影响肠道神经、免疫和内分泌信号。
不过,这里也需要避免一个常见误解:不能简单说“酪胺进入大脑后,会被多巴胺β-羟化酶转化为多巴胺”。事实上,多巴胺β-羟化酶的经典作用,是将多巴胺转化为去甲肾上腺素。
肠道菌群影响多巴胺系统,并不是直接往大脑里输送多巴胺,而是通过间接方式,比如:
衰老后,这条肠-脑神经通路可能变迟钝
在衰老过程中,肠道菌群组成、肠屏障功能和色氨酸代谢都会发生变化。这些变化可能影响5-羟色胺合成相关酶,例如色氨酸羟化酶1(TPH1)的表达或活性,并进一步改变肠—脑信号传递。
与此同时,衰老相关的肠道菌群失调,还可能削弱迷走传入神经元功能。也就是说,肠道里的信号还在发生,但大脑对这些信号的接收和响应能力可能下降。
而海马与学习、记忆和空间认知密切相关。因此,当迷走神经介导的肠—脑通讯减弱时,海马神经元活动和记忆编码过程也可能受到影响。
相关动物研究显示,恢复较年轻的肠道菌群组成,或改善肠道代谢环境,可能有助于增强迷走神经介导的肠—脑通讯,并改善部分与衰老相关的认知功能下降。
最新 Nature 研究:神经通路在认知老化中具有因果作用
近期,Cox等人在《Nature》发表的研究进一步证实:
衰老相关的肠道菌群失调,会通过抑制迷走传入神经元功能,削弱大脑接收肠道内感受信号的能力。
这种信号传递受阻,最终会导致海马功能下降和记忆编码受损。
这一发现的重要意义在于,它不仅说明肠道菌群与大脑衰老有关,更进一步证明了:神经通路在认知老化过程中具有直接的因果作用。
▼
编辑
代 谢 通 路
肠道菌群释放的化学信号,如何影响大脑衰老?
如果说迷走神经像是信息高速路,那么微生物代谢产物就像是肠道菌群释放出来的化学信号。
这些信号可作用于肠道、免疫系统、血管内皮细胞,甚至影响中枢神经系统的炎症和屏障功能。其中研究最深入的代谢物,就是短链脂肪酸。
★ 短链脂肪酸:连接饮食、菌群和大脑
短链脂肪酸,简称SCFAs,是膳食纤维经肠道菌群发酵后产生的主要代谢物,主要包括:乙酸、丙酸、丁酸。
编辑
doi.org/10.1007/978-981-99-8803-7
它们不仅作用于肠上皮细胞、免疫细胞和肠神经系统,也可以通过血液循环、迷走神经和免疫调节等途径,影响中枢神经系统功能。
短链脂肪酸在体内存在明显的浓度梯度
一般来说,肠腔和粪便中的浓度最高,门静脉中降低,进入外周血后进一步下降,而进入脑组织或脑脊液中的浓度通常更低。
编辑
因此,短链脂肪酸影响大脑,更可能是先作用于肠道和外周免疫系统,再通过炎症调节、迷走神经信号、血脑屏障和胶质细胞功能,间接影响脑功能。
★ GPR受体:短链脂肪酸发挥作用的关键开关
短链脂肪酸可以通过多种受体发挥作用,其中较重要的包括:GPR43、GPR41、GPR109A。
GPR43(FFAR2)主要对乙酸和丙酸敏感,可以调节免疫细胞活动、炎症因子释放和代谢状态。
在神经炎症模型中,SCFAs可抑制NF-κB相关促炎信号,降低IL-1β、TNF-α、IL-6等炎症因子表达,并影响小胶质细胞成熟、活化状态和吞噬功能。
GPR41(FFAR3)更多参与肠神经系统、外周神经节和肠内分泌细胞相关信号。丙酸等短链脂肪酸可能通过这一通路影响神经元兴奋性、肠激素释放和自主神经活动。
GPR109A(HCA2)是丁酸和烟酸相关的受体之一。
丁酸除了可以作用于受体,还能作为HDAC抑制剂,通过表观遗传机制调节炎症、神经发生、髓鞘形成和突触可塑性相关基因表达。因此,丁酸对脑功能的影响是受体信号、免疫调节、表观遗传和代谢调控共同作用的结果。
★ 血脑屏障:守住大脑稳定环境的关键屏障
代谢通路影响大脑衰老,一个非常关键的环节是血脑屏障。
血脑屏障由脑微血管内皮细胞、紧密连接蛋白、基底膜、周细胞和星形胶质细胞终足共同构成。它就像大脑的安全门,负责控制哪些物质可以进入脑内,哪些物质应该被阻挡在外。
当血脑屏障完整时,大脑可以维持相对稳定的内部环境;但如果血脑屏障变得薄弱,外周炎症因子、微生物相关分子和其他有害信号就更容易影响中枢神经系统,进而推动神经炎症和认知功能下降。
肠道菌群可以影响血脑屏障的成熟和通透性
研究显示,无菌小鼠的血脑屏障通透性增加,紧密连接蛋白表达下降;而定植正常菌群或补充丁酸钠后,血脑屏障完整性可以得到改善,并伴随occludin、claudin-5等紧密连接相关蛋白上调。
丁酸盐对血脑屏障的保护作用,主要体现在几个方面:
在部分衰老或神经炎症动物模型中,丁酸盐补充可降低血脑屏障通透性和脑内炎症负荷。不过,这些效果仍会受到实验模型、剂量、干预时间和宿主状态影响。
★ 色氨酸:连接菌群、情绪和大脑炎症的通路
色氨酸主要有三条代谢方向:
当衰老、慢性炎症、肠道菌群失调时,色氨酸代谢方向可能发生偏移。也就是说,同样是色氨酸,最终走向不同代谢分支,对大脑产生的影响可能完全不同。
编辑
吲哚丙酸:具有神经保护潜力的菌群代谢物
在色氨酸代谢产物中,吲哚丙酸(IPA)是较受关注的一种菌群来源代谢物。
部分细菌,例如Clostridium sporogenes,可以通过与fldAIBC基因簇相关的芳香族氨基酸代谢通路参与吲哚丙酸生成。
吲哚丙酸具有抗氧化、抗炎、屏障保护作用,可能通过清除自由基、减轻线粒体损伤、调节AhR/PXR相关信号,以及维持肠屏障和血脑屏障功能发挥保护作用。
在阿尔茨海默病和认知障碍相关研究中,较低的吲哚丙酸水平可能与认知下降、代谢异常或神经退行性改变有关。
注:这类发现仍需要更多队列研究和干预研究验证。
IPA受到关注,主要有几个原因:
★ TMAO:放大炎症与认知风险的信号
TMAO,也就是三甲胺-N-氧化物,就是近年来受到关注的一类潜在风险代谢物。
TMAO的形成通常需要两个步骤:
TMAO最早主要在心血管疾病和肾脏疾病中受到关注,近年来也被用于研究肠道菌群与认知障碍、脑血管损伤和阿尔茨海默病之间的关系。
人体研究显示,轻度认知障碍或阿尔茨海默病患者脑脊液中的TMAO水平可能高于认知正常个体,并且较高TMAO水平可能与阿尔茨海默病相关病理、神经退行性标志物或认知表现存在相关性。
注:这些结果主要是观察性关联,不能直接证明TMAO就是认知下降的因果驱动因素。TMAO水平还会受到饮食、肾功能、年龄、心血管代谢状态、药物和检测方法等多种因素影响。
★ 细菌结构成分:也会影响炎症
除了小分子代谢物,细菌来源的结构成分也可能参与肠-脑轴调节,例如脂多糖LPS、肽聚糖PGN、脂壁酸LTA,以及细菌淀粉样蛋白。
这些分子本身不一定需要大量进入脑实质,也可以通过外周免疫激活、血脑屏障损伤、脑血管内皮反应、迷走神经信号和脑室周围器官等途径,影响中枢炎症状态。
LPS是研究最充分的细菌结构成分之一
当肠屏障受损、外周LPS水平升高时,它可以激活免疫系统,诱导IL-1β、TNF-α、IL-6等炎症因子释放;也可以作用于脑血管内皮细胞,破坏紧密连接结构。
若血脑屏障通透性本身已经升高,这些炎症信号就更容易影响中枢神经系统,进一步推动神经炎症和认知功能下降。
细菌淀粉样蛋白curli/CsgA与神经退行性疾病的关系近年来也受到关注。部分研究认为,curli可能通过交叉播种或免疫预激活机制,促进宿主淀粉样蛋白病理,例如Aβ或α-syn聚集。
注:不过,目前关于细菌淀粉样蛋白在人体脑内直接转运和共定位的证据仍然有限。
机制补充:LPS如何通过TLR4/NF-κB通路放大炎症反应?
LPS引发炎症反应的核心通路之一,是TLR4/NF-κB信号轴。简单来说,LPS会先被免疫识别分子捕获,并激活TLR4受体,随后启动MyD88依赖性炎症通路,最终促使NF-κB进入细胞核,诱导IL-1β、TNF-α、IL-6等炎症因子表达。
编辑
这一过程在细胞模型中启动很快,近端信号可在数分钟至十余分钟内发生,炎症基因表达则通常在数小时内明显升高。因此,如果LPS刺激持续存在,就可能不断放大外周炎症,并通过血脑屏障、脑血管内皮细胞和小胶质细胞等途径,推动中枢神经炎症。
血脑屏障渗漏:炎症信号如何更容易影响大脑
衰老、慢性炎症、肠道菌群失调和代谢异常,都可能削弱血脑屏障完整性。
其核心变化包括:紧密连接蛋白下降、内皮细胞炎症增强、周细胞覆盖减少、基底膜重塑、星形胶质细胞终足功能异常,以及转胞吞作用增加。
在衰老动物中,海马、皮层和脑室周围区域可出现不同程度的血脑屏障通透性升高。常见分子改变包括occludin、claudin-5、ZO-1等紧密连接蛋白表达下降,内皮细胞黏附分子增加,MMP-2/MMP-9活性增强,以及小胶质细胞和星形胶质细胞炎症反应增强。
编辑
doi.org/10.1007/978-981-99-8803-7
LPS和其他细菌来源分子可通过TLR4激活脑血管内皮细胞炎症通路,诱导NF-κB、MLCK和RhoA/ROCK等信号,导致细胞骨架收缩、紧密连接重排,最终增加血脑屏障通透性。
其中,MLCK激活后可促进肌球蛋白轻链磷酸化,引起细胞骨架收缩和紧密连接蛋白重新分布。同时,炎症信号还可促进occludin、claudin-5、ZO-1的内吞或降解,使屏障结构进一步变弱。
▸▸
总体来看,代谢通路是肠道菌群影响大脑的一套化学语言。短链脂肪酸和吲哚丙酸等代谢物,可能通过抗炎、抗氧化和保护血脑屏障支持脑健康;而TMAO、LPS及部分细菌结构成分,则可能在菌群失衡和慢性炎症背景下,增加神经炎症和认知下降风险。
免 疫 & 内 分 泌 通 路
炎症和压力轴如何共同影响大脑?
很多时候,肠道菌群失调会先影响肠屏障和外周炎症状态,而炎症信号又会进一步影响血脑屏障、胶质细胞以及HPA轴,也就是下丘脑—垂体—肾上腺轴。
因此,理解免疫与内分泌通路,要看到它们如何共同参与“肠道菌群—系统性炎症—神经炎症—压力反应—认知功能下降”这一连续过程。
肠屏障受损:系统性炎症的起点
肠道本身就是人体最大的免疫相关器官之一。正常情况下,肠道菌群与肠黏膜免疫系统之间维持着一种动态平衡:既要允许共生菌存在,又要防止有害微生物和炎症信号过度扩散。
但在衰老、慢性应激、感染、膳食结构改变或菌群失调等情况下,这种平衡可能被打破。此时,肠上皮屏障功能下降,紧密连接蛋白减少,黏液层变薄,抗菌肽分泌降低,肠道就可能进入通常所说的肠漏状态。
编辑
doi.org/10.1007/978-981-99-8803-7
一旦肠屏障变得不够严密,LPS、肽聚糖、细菌DNA、鞭毛蛋白等微生物相关分子就更容易进入肠道固有层和循环系统,激活单核细胞、巨噬细胞、树突状细胞和中性粒细胞。
随后,TNF-α、IL-1β、IL-6、IL-17、IFN-γ、CCL2、CXCL10等炎症因子释放增加,形成持续的低度系统性炎症。
这种炎症并不一定非常剧烈,却可能长期存在。对大脑来说,长期低度炎症比短期强烈炎症更隐蔽,也更容易在衰老过程中逐渐累积影响。
外周炎症如何传到大脑?
外周炎症影响大脑,并不一定意味着炎症因子必须大量直接进入脑实质。外周炎症可以通过多条路径把信号传递给中枢神经系统。
编辑
doi.org/10.1007/978-981-99-8803-7
因此,外周炎症与神经炎症之间,长期系统性炎症会让大脑处于更容易被激活的状态,降低神经元对代谢压力、氧化应激和炎症刺激的耐受性,进而影响突触修剪、神经递质平衡和认知功能。
小胶质细胞:从巡逻者变成高敏状态
在中枢神经系统中,小胶质细胞是最重要的固有免疫细胞之一。
在年轻健康状态下,小胶质细胞主要处于稳态监视状态,像大脑的巡逻者,负责识别病原信号、清除细胞碎片、参与突触修剪,并与神经元、星形胶质细胞和血管细胞共同维持脑内稳态。
这类稳态小胶质细胞通常表达P2RY12、TMEM119、CX3CR1等标志物。
编辑
但随着年龄增长,小胶质细胞会逐渐发生变化。它们可能出现促炎因子表达升高、吞噬功能异常、脂质代谢紊乱、补体通路激活,以及抗原呈递相关基因增强等特征。如果同时存在肠道菌群失调和系统性炎症,小胶质细胞就更容易进入一种预激活或疾病相关状态。
预激活,可理解为:小胶质细胞还没有完全进入强烈炎症反应,但已经变得更敏感。一旦再次遇到LPS、IL-1β、TNF-α、Aβ、损伤相关分子或氧化应激信号,就可能产生更强烈的炎症反应。
此时,IL-1β、TNF-α、IL-6、C1q、C3、iNOS等分子可能升高,进而影响突触功能和神经网络稳定性。
编辑
过去常用M1/M2模型描述小胶质细胞状态,认为M1偏促炎,M2偏抗炎和修复。但近年来单细胞测序研究显示,小胶质细胞远比这种二分法复杂。
在不同疾病和衰老背景下,小胶质细胞可能呈现疾病相关型、干扰素响应型、增殖型、吞噬型和衰老相关状态等多种亚群。
总的来说,衰老和菌群失调会让小胶质细胞从稳态监视状态,逐渐偏向促炎、吞噬异常、补体激活和疾病相关转录状态。
星形胶质细胞:保护反应也可能变成损伤因素
星形胶质细胞是大脑中非常重要的支持细胞。它们参与维持离子稳态、清除谷氨酸、支持血脑屏障、调节能量代谢和维持突触功能。
在健康状态下,星形胶质细胞更多是在帮助大脑维持稳定环境。但在神经退行性疾病、长期慢性炎症或血脑屏障受损的背景下,星形胶质细胞会从维持稳定的状态,转变为更加活跃的反应性状态。
可以把它理解为:当大脑受到炎症或损伤刺激后,星形胶质细胞会被激活,开始参与防御、修复和炎症调节。
编辑
这种反应性星形胶质细胞通常会出现一些分子标志物升高,例如:GFAP、Vimentin、C3、S100B、CXCL10、SERPINA3和LCN2。
同时,它们的形态也会发生变化,比如细胞体变大、突起重新排列,并分泌更多炎症因子、趋化因子或补体蛋白。
在肠道菌群失调和全身炎症背景下,来自外周的LPS、TNF-α、IL-1α、C1q和IL-1β等信号,都可能进一步激活星形胶质细胞。
短期来看,这种激活有一定保护意义,可以帮助隔离损伤、限制炎症扩散。
但如果激活长期持续,就可能从保护反应转变为损伤因素。长期反应性星形胶质细胞会释放更多炎症介质、趋化因子和补体蛋白,进而促进突触损伤、血脑屏障功能下降,并与认知功能受损有关。
因此,GFAP、S100B、CXCL10等指标,可以作为观察星形胶质细胞反应性和神经炎症程度的辅助参考。
HPA轴:菌群也会影响压力反应
HPA轴是人体应对压力的重要系统。简单来说,当身体感受到压力时,下丘脑会释放相关信号,促使垂体释放ACTH,最终刺激肾上腺分泌糖皮质激素。
编辑
经典无菌动物研究显示,无菌小鼠在急性应激后会表现出更强的ACTH和皮质酮反应。这提示,正常肠道菌群可能参与HPA轴发育和应激敏感性的设定。
早期定植某些共生菌,例如Bifidobacterium infantis,可以部分逆转无菌小鼠夸大的HPA轴应激反应。这说明,特定菌群可能在一定程度上帮助调节压力轴的敏感性。
压力轴失衡:为什么慢性压力会影响记忆?
当慢性应激持续存在时,HPA轴会长期处于激活状态,导致糖皮质激素持续升高。过量糖皮质激素可以通过糖皮质激素受体影响海马、杏仁核和前额叶皮层功能。
在海马中,长期高糖皮质激素可能抑制BDNF表达,削弱神经发生和突触可塑性,并增加神经元对谷氨酸兴奋性毒性、氧化应激和炎症损伤的敏感性。
这对认知功能尤其重要。因为海马不仅参与学习和记忆,还参与HPA轴的负反馈调节。
于是,可能形成一个恶性循环:
慢性应激 → HPA轴过度激活 → 海马功能下降 → 负反馈减弱 → 应激反应进一步放大。
编辑
菌群如何调节HPA轴?
肠道菌群可以通过多种方式调节HPA轴敏感性。
也就是说,肠道菌群对HPA轴的影响是神经、免疫、代谢、内分泌信号共同参与的结果。
随着肠道菌群-肠-脑轴研究的深入,越来越多证据显示,特定菌群变化可能参与认知老化、神经炎症、睡眠障碍和神经退行性疾病进展。
需要强调的是,不同菌种的证据强度并不相同。有些已经在动物模型中获得较强的因果验证,有些主要来自人群相关性研究,还有一些机制仍停留在体外实验或推测阶段。
1、Parabacteroides goldsteinii
动物模型中证据较强的促认知衰退候选菌
在年龄相关认知下降研究中,Parabacteroides goldsteinii 是近年来受到高度关注的菌种之一。
Cox 等人在 2026 年发表于《Nature》的研究中,通过多组学筛选、菌群移植、单菌定殖和靶向干预等方法,提示该菌可能参与小鼠年龄相关记忆下降过程。
研究显示,随着小鼠年龄增长,P. goldsteinii 的丰度升高,并与认知表现下降相关。
更重要的是,在功能验证中,该菌及其相关代谢产物能够削弱肠-脑信号,影响外周免疫状态,并最终损害学习和记忆功能。
目前较明确的机制,集中在中链脂肪酸产生上。
P. goldsteinii 可以产生己酸、庚酸、辛酸等中链脂肪酸。这些代谢物可能通过影响外周髓系细胞和肠道传入神经信号,进一步影响脑功能。
相比之下,胆汁酸代谢、黏液层降解和色氨酸代谢是否构成该菌促认知衰退的主要机制,目前仍需更多直接证据支持。
编辑
P. goldsteinii 可以被视为“小鼠年龄相关认知下降中具有较强因果证据的候选风险菌”。但还不能直接等同于人类认知衰退的核心病因。
2、 Enterobacteriaceae
内毒素和细菌淀粉样蛋白相关的炎症风险
肠杆菌科细菌,包括 Escherichia coli 、 Klebsiella pneumoniae 等,是肠道炎症和系统性低度炎症研究中常见的风险菌群。
它们的一个共同特点是含有脂多糖,也就是 LPS。
LPS 是一种典型的内毒素,可以通过TLR4/NF-κB等通路诱导促炎因子释放,增加肠屏障和血脑屏障通透性,并促进小胶质细胞活化。这一过程可能参与神经炎症、突触功能损害和认知下降。
编辑
其中,部分 E. coli 菌株还能产生curli菌毛淀粉样蛋白。Curli的主要结构蛋白CsgA具有淀粉样特征,在实验模型中可能促进宿主淀粉样蛋白聚集,并增强神经炎症反应。
也就是说,E. coli 的潜在风险不只来自LPS诱导炎症,也可能与细菌淀粉样蛋白影响Aβ或α-syn相关病理有关。
Klebsiella pneumoniae 在部分炎症性疾病、代谢异常和神经退行性疾病患者中也可见富集。
它的潜在风险主要来自LPS、荚膜多糖和促炎免疫激活。
若要进一步声称其特定代谢物可直接穿过血脑屏障并促进 α-syn 磷酸化,则需要明确的原始研究支持。
3、Veillonella、Citrobacter
可能通过睡眠和炎症影响认知
睡眠质量下降,是认知衰退的重要风险因素。因为睡眠不仅关系到精神状态,也参与记忆巩固、突触可塑性维持,以及大脑代谢废物清除。
在一些临床研究中,Veillonella 和 Citrobacter 与睡眠障碍和潜在认知损害有关。
例如,在卒中后睡眠障碍患者(PSSD)的粪便中,这两类细菌被观察到显著富集,并且其丰度与匹兹堡睡眠质量指数评分呈正相关。
▾
Veillonella是革兰氏阴性厌氧球菌,主要通过发酵乳酸产生丙酸和乙酸。
在睡眠障碍背景下,如果Veillonella过度生长,可能通过影响GABA能传递、促进神经炎症或改变肠—脑轴信号,间接影响睡眠质量。而睡眠紊乱本身,又会进一步影响海马突触可塑性、记忆巩固和执行功能。
▾
Citrobacter属于肠杆菌科,其富集常提示肠道生态失调、肠屏障功能障碍和炎症状态。该属细菌产生的内毒素可能触发系统性炎症,进而影响脑功能。
这两种细菌通过干扰睡眠质量和昼夜节律调节,形成”菌群失调-睡眠障碍-认知下降“的恶性循环。
4、脱硫弧菌属 Desulfovibrio
帕金森和硫化氢代谢相关的风险菌
脱硫弧菌属(Desulfovibrio属)是典型的硫酸盐还原菌,可以产生硫化氢,也就是H₂S。
已有研究报道,脱硫弧菌属在帕金森病患者肠道中可能升高,并且部分菌株可在模型系统中促进α-突触核蛋白聚集。这提示它可能参与帕金森病相关的肠-脑轴病理过程。
编辑
潜在机制主要包括几个方面。
不过,H₂S并不是单纯的有害分子。在生理浓度下,它也是一种重要的气体信号分子,参与血管舒张、线粒体调节和神经信号转导。在特定病理背景下,脱硫弧菌属可能通过增加硫化氢、LPS和炎症负荷,加重神经退行性病理风险。
编辑
5、Prevotella copri
高度依赖饮食背景的双向菌
Prevotella copri 不能简单归类为“有害菌”或“有益菌”。它的功能很大程度上取决于饮食结构、宿主代谢状态和菌株差异。
这个例子也提醒我们:
判断一种菌是风险还是保护,不能脱离饮食结构、菌株差异和宿主状态。同一种菌,在不同生态背景下,可能产生完全不同的健康效应。
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
风险菌如何共同推动认知衰退?
总体来看,可能加速认知衰退的菌群并非通过单一路径发挥作用,而是通过多个相互连接的机制节点共同影响脑功能。
代谢节点
部分菌群可增加 LPS、H₂S、中链脂肪酸、TMAO 等促炎或应激相关代谢物;
同时减少短链脂肪酸、吲哚丙酸等具有屏障保护和神经保护潜力的代谢物。
屏障节点
菌群失衡可能削弱肠道黏液层和紧密连接结构,增加肠道通透性,使 LPS 和其他微生物相关分子更容易进入循环。
系统性炎症进一步影响血脑屏障,使外周炎症信号更容易传递至中枢神经系统。
免疫节点
LPS、细菌淀粉样蛋白和异常代谢物可激活 TLR4/NF-κB、NLRP3 炎症小体等通路,促使 TNF-α、IL-1β、IL-6 等促炎因子升高,并诱导小胶质细胞活化。
神经信号节点
菌群变化可能影响 5-HT、GABA、多巴胺等神经递质相关通路,也可能通过迷走神经、肠神经系统和内分泌信号改变脑内网络活动。
蛋白病理节点
部分细菌产物,如 LPS、curli 淀粉样蛋白或硫化氢相关应激信号,可能促进 Aβ、α-syn 或 tau 相关病理过程,但不同蛋白病理对应的证据强度并不一致,需要分别讨论。
这些节点之间存在正反馈关系:菌群失衡可诱导炎症,炎症进一步破坏屏障和改变肠道生态,屏障损伤又放大微生物产物进入循环的机会,最终形成:
菌群失衡—屏障破坏—系统性炎症—神经炎症—认知下降
编辑
因此,针对认知衰退的菌群干预不应只盯着某个坏菌,而应同时考虑饮食结构、炎症状态、屏障功能、代谢物、宿主本身是否存在神经退行性病理背景。
与促炎或促衰老菌群相对应,肠道中也存在一批可能支持认知健康的有益菌。这些菌群可通过产生短链脂肪酸、调节色氨酸代谢、降低系统性炎症、维护肠道屏障和影响肠—脑轴神经信号,对脑功能产生保护作用。
需要注意的是,认知保护作用往往具有明显的菌株特异性和宿主背景依赖性。
因此,下述菌种应按照证据强度分层理解:部分已有小样本人群试验支持,部分主要来自动物实验,还有一些仍属于机制推测或观察性关联。
1、双 歧 杆 菌 属
认知和压力调节研究中证据较多的益生菌
双歧杆菌属是认知健康研究中较受关注的一类有益菌。它们的潜在作用包括改善肠道屏障、降低低度炎症、调节色氨酸代谢,以及影响肠-脑轴神经信号。
其中,Bifidobacterium longum 1714 是研究较多的精神益生菌菌株之一。已有随机、双盲、安慰剂对照研究显示,该菌株可能影响健康成人的压力反应、脑电活动和记忆相关表现。
研究提示,补充 B. longum 1714 后,受试者在急性压力任务中的生理和心理反应有所减弱,部分记忆任务表现改善,并伴随脑活动模式变化。
从机制上看,B. longum 1714 可能通过调节压力轴、肠-脑神经信号和神经递质相关通路,对认知和情绪状态产生影响。
在轻度认知障碍人群中,Bifidobacterium breveMCC1274/A1 比 B. breve M-16V 有更直接的证据。
已有研究提示,B. breve MCC1274/A1 补充可能改善部分认知测验表现,并可能减缓脑萎缩进展。
不过,这类结果目前仍需要更大样本、更长随访和独立重复研究来确认。
总体而言,双歧杆菌属可以被看作认知健康干预中较有潜力的一类益生菌,但实际效果仍要看具体菌株、受试者基线菌群状态,以及是否存在认知障碍、炎症或代谢异常等背景。
2、乳 酸 杆 菌 属
通过神经递质、炎症和屏障功能影响脑健康
乳酸杆菌属包含多个被研究较多的益生菌菌株。鼠李糖乳杆菌Lacticaseibacillus rhamnosus GG(LGG) 是研究最充分的益生菌之一。
动物研究显示,LGG 可在炎症、应激或代谢异常相关模型中改善认知表现,并与海马 BDNF/TrkB 信号、肠屏障改善和系统性炎症下降有关。
在人群研究中,LGG 也被观察到可能与中老年人认知表现改善相关,但具体效果受人群基础状态、干预时间和联合饮食因素影响。
从机制上看,LGG 可能通过改善肠屏障、减少外周炎症、调节 GABA 受体表达和影响迷走神经信号发挥作用。经典动物研究曾显示,某些乳酸杆菌对 GABA 受体表达和行为表型的影响依赖迷走神经完整性。
Lactiplantibacillus plantarum PS128是另一个受到关注的精神益生菌菌株。
动物研究显示,PS128 可在阿尔茨海默病模型中改善认知功能,并可能通过调节丙酸水平、GSK3β 活性和神经炎症发挥作用。
该菌株也被用于抑郁、焦虑、睡眠和神经发育相关研究,但目前关于其在人类轻度认知障碍中显著提高脑脊液 GABA 或直接改善执行功能的证据仍需进一步核实。
乳杆菌属Lactobacillus——维持肠道和阴道健康不可忽缺的角色
3、Akkermansia muciniphila
以屏障和代谢改善为核心的下一代益生菌
Akkermansia muciniphila 是下一代益生菌研究中的代表菌种。它能利用肠道黏液作为营养来源,并与黏液层更新、肠屏障完整性和代谢健康密切相关。
编辑
其潜在有益机制主要包括三方面。
人体研究方面,已有试验显示,A. muciniphila,尤其是巴氏灭活形式,在超重、肥胖或胰岛素抵抗人群中具有良好的安全性,并可能改善部分代谢指标和炎症相关指标。
在动物模型中,A. muciniphila 已被报道可改善睡眠剥夺、肝病相关脑功能异常或阿尔茨海默病模型中的认知损害,并与海马炎症降低、BDNF/5-HT 信号改善或 Aβ 病理减轻相关。
不过,关于 A. muciniphila 直接改善老年人认知、提高 BDNF 或改善处理速度的临床证据,目前仍不充分。
双面明星菌:Akkermansia muciniphila——从肠道微生态到情景治疗的探索
肠道重要菌属——Akkermansia Muciniphila,它如何保护肠道健康
4、产 丁 酸 菌
Faecalibacterium 与 Roseburia 的屏障和抗炎作用
产丁酸菌是认知健康相关菌群中最值得关注的一类菌。丁酸不仅是结肠上皮细胞的重要能量来源,还具有组蛋白去乙酰化酶抑制、抗炎、促进紧密连接和调节小胶质细胞功能等作用。
▾
Faecalibacterium prausnitzii是人体肠道中重要的丁酸产生菌,也是健康成人肠道内较丰富的厌氧菌之一。它主要通过丁酰辅酶A:乙酸辅酶A转移酶等通路产生丁酸,并具有较强的抗炎潜力。
在阿尔茨海默病和认知障碍相关研究中,Faecalibacterium 等产丁酸菌减少常被认为是菌群失衡的重要特征。
丁酸可能通过多条路径支持认知健康:
肠道核心菌属——普拉梭菌(Faecalibacterium Prausnitzii),预防炎症的下一代益生菌
▾
Roseburia intestinalis 同样是重要的产丁酸菌。Roseburia属丰度降低常见于炎症性肠病、代谢异常和部分神经退行性疾病相关菌群失衡状态。其潜在保护作用主要来自丁酸产生、肠屏障维护和炎症调节。
关于 Roseburia 是否通过共轭亚油酸、胆汁酸或吲哚丙酸直接发挥神经保护作用。
Faecalibacterium 和 Roseburia 共同维持肠道厌氧生态、丁酸供给、屏障稳定和低炎症状态。这些基础环境对于延缓脑老化和维持认知功能可能具有重要意义。
5、其 他 菌
与认知保护相关的候选菌
▾
Clostridium sporogenes是色氨酸代谢研究中的重要菌种,可通过相关代谢通路产生吲哚丙酸。吲哚丙酸是一种具有抗氧化和屏障保护作用的微生物来源代谢物,也被认为可能抑制 Aβ 聚集和神经炎症。
动物研究显示,通过 C. sporogenes 与膳食底物联合提高吲哚丙酸水平,可能改善阿尔茨海默病模型中的认知表现。不过,人类临床证据仍有限。
▾
Lachnospiraceae 中包含多种产短链脂肪酸菌。部分成员可能参与膳食多酚、坚果成分和复杂碳水化合物代谢,并与较好的炎症状态和代谢健康相关。
若某些队列研究显示 Lachnospiraceae UCG-004 与坚果摄入和认知表现相关,是一个观察性发现,不能直接推断为因果保护菌。
▾
Flavonifractor plautii 可参与黄酮类化合物代谢,但其健康意义具有情境依赖性。它可能参与多酚转化,提高部分代谢物的生物利用度;但在不同疾病状态下,其丰度变化和功能解释并不一致。
有益菌如何共同支持认知健康?
认知保护相关菌群可能通过多个互补层面共同发挥作用。
编辑
——代谢层面
有益菌群可产生丁酸、丙酸、乙酸等短链脂肪酸,激活 GPR41、GPR43、GPR109A 等受体,并通过表观遗传机制调节炎症和神经营养相关基因表达。
——在屏障层面
双歧杆菌、乳酸杆菌、Akkermansia 和产丁酸菌均可能增强肠道紧密连接、促进黏液层稳定、减少 LPS 易位,并间接降低血脑屏障受到系统性炎症冲击的风险。
——在免疫层面
这些菌群和代谢物可能促进 Treg 分化、增加 IL-10 等抗炎信号,抑制 NF-κB 和 NLRP3 炎症小体过度激活,并调节小胶质细胞和星形胶质细胞反应状态。
——在神经信号层面
部分菌株可能影响 GABA、5-HT、多巴胺和色氨酸代谢相关通路,也可能通过迷走神经和肠神经系统改变脑内应激反应和情绪—认知网络活动。
——在结构和功能层面
有益菌群的长期影响可能表现为海马炎症减轻、BDNF 等神经营养因子上调、突触可塑性改善和记忆巩固能力增强。
不过,这些结构层面的证据目前更多来自动物实验,人类中仍需更多影像学、脑脊液标志物和长期认知随访研究支持。
编辑
总体来看,维持认知健康的菌群依赖一个稳定、多样、低炎症、富含产短链脂肪酸和色氨酸有益代谢能力的肠道生态系统。益生菌干预若要真正影响认知健康,通常也需要与高纤维饮食、多酚摄入、规律运动、睡眠管理和代谢风险控制共同发挥作用。
除了直接靶向肠道微生物本身,通过调节菌群下游的免疫、代谢和神经通路来干预认知衰老,也是一个重要方向。
这类策略的优势在于,它们不完全依赖于复杂且高度个体化的菌群组成,而是瞄准更接近病理效应的分子和通路,例如 GPR84、IL-1β、短链脂肪酸、胆汁酸受体和迷走神经信号。
不过,这些策略的证据强度并不相同。
因此,在讨论这些策略时,应区分机制证据、动物实验结果、临床可用疗法。
GPR84 抑制:阻断菌群代谢物引发的炎症信号
GPR84 抑制是连接菌群代谢物与免疫炎症反应的一个新兴干预方向。
GPR84 是一种主要在髓系免疫细胞中表达的 G 蛋白偶联受体,可被中链脂肪酸激活。这就让 GPR84 成为一个重要接口:
Cox 等人在 2026 年的研究中发现,在小鼠模型中,Parabacteroides goldsteinii 可以产生中链脂肪酸,并通过激活髓系细胞上的 GPR84 信号,引发外周炎症。
这种炎症反应进一步削弱迷走神经介导的肠—脑信号传递,最终影响学习和记忆功能。
更重要的是,研究显示,使用小分子 GPR84 拮抗剂后,可以减轻 P. goldsteinii 或中链脂肪酸诱导的记忆损害,并抑制相关髓系炎症反应。
编辑
这一发现的意义在于,它把 GPR84 从一个机制节点推进到了潜在药物靶点的位置。
相比直接清除某一种细菌,靶向 GPR84 的理论优势是:即使不同人的菌群组成不一样,只要最终都汇聚到“中链脂肪酸—GPR84—髓系炎症”这条通路,就有可能通过阻断下游炎症效应来发挥作用。
不过,目前 GPR84 抑制用于认知老化仍处于早期转化阶段。现有 GPR84 拮抗剂主要围绕炎症性肠病、纤维化、慢性炎症疾病开发。
未来还需要进一步验证它在老年人、轻度认知障碍或神经退行性疾病中的疗效和安全性。同时,也要评估长期抑制 GPR84 是否会影响正常免疫防御和组织修复。
IL-1β 通路阻断:能否恢复被炎症削弱的肠—脑信号?
IL-1β 是连接外周炎症与神经功能改变的重要促炎细胞因子。它不仅参与系统性炎症和神经炎症,也可能通过作用于外周感觉神经元,改变肠-脑轴信号传递。
Cox 等人的机制研究提示,在小鼠中,P. goldsteinii 和中链脂肪酸诱导的髓系炎症可以增加 IL-1β 信号。随后,IL-1β 作用于表达 PHOX2B 的迷走感觉神经元,抑制其正常传入功能,从而削弱肠道向大脑传递的保护性内感受信号。
换句话说,炎症并不只是让身体处于炎症状态,它还可能直接干扰肠道向大脑传递信息的神经通路。
动物实验显示,阻断 IL-1β 相关信号可以部分逆转这一过程,恢复迷走神经功能,并改善认知表现。
目前,临床上已经有多种 IL-1 通路药物。
例如,Anakinra 是 IL-1 受体拮抗剂,可以同时阻断 IL-1α 和 IL-1β 信号;
canakinumab 是靶向 IL-1β 的单克隆抗体;
rilonacept 则是可以结合 IL-1 的融合蛋白。
这些药物主要用于自身炎症性疾病、部分风湿免疫疾病和复发性心包炎等场景。
CANTOS 研究显示,canakinumab 可以降低既往心肌梗死且炎症水平升高患者的心血管事件风险,支持了靶向炎症可以改善慢性疾病结局这一思路。
但需要注意的是,CANTOS 不能直接证明 IL-1β 阻断能够改善认知功能。IL-1β 抑制剂是否能用于认知老化或阿尔茨海默病,还需要专门设计的临床试验验证。
此外,IL-1β 并不是单纯有害的信号。它也参与宿主防御、感染控制和组织修复。长期或全身性阻断 IL-1 通路,可能增加感染风险。
因此,未来如果将 IL-1β 阻断用于认知老化,更可能适合特定人群,例如存在明显外周炎症、肠屏障损伤或 IL-1β 活化特征的亚型患者,而不是广泛用于所有老年人。
短链脂肪酸补充:与其直接补充,不如促进自身产生
在几类短链脂肪酸中,丁酸最受认知健康研究关注。
动物实验显示,丁酸钠可以通过抑制组蛋白去乙酰化酶,也就是 HDAC,增加 BDNF 等神经营养因子的表达,促进突触可塑性,并减轻小胶质细胞过度活化和神经炎症。
这些作用使丁酸成为连接“肠道菌群—代谢物—脑功能”的重要分子。
乙酸和丙酸也可通过 GPR41、GPR43 等受体调节免疫反应、能量代谢和肠道屏障功能。
但需要注意的是,短链脂肪酸并不是越多越好,也不能把乙酸、丙酸和丁酸简单看成完全相同的保护分子。
尤其是丙酸,在不同模型中可能呈现不同效应,具有明显的剂量和背景依赖性。
编辑
直接补充短链脂肪酸也面临一些现实问题。
因此,相比直接大量补充短链脂肪酸,更现实的策略可能是:
也就是说,短链脂肪酸干预的关键,不是简单补多少,而是如何让身体在合适的位置、合适的时间,产生合适水平的代谢信号。
编辑
胆汁酸代谢:一个新兴但还不成熟的方向
胆汁酸不仅参与脂肪消化吸收,也是重要的信号分子。
肠道菌群可通过胆盐水解、脱羟基化等反应改变胆汁酸谱,而不同胆汁酸又可通过 FXR、TGR5 等受体影响糖脂代谢、炎症反应和屏障功能。
在脑健康研究中,TGR5 尤其受到关注。TGR5 在小胶质细胞和星形胶质细胞等细胞中均有表达。
动物和细胞实验提示,激活 TGR5 可能抑制神经炎症、调节小胶质细胞活化状态,并在某些模型中改善认知表现。
FXR 主要在肝脏和肠道发挥代谢调节作用,但也可能通过改善外周代谢、炎症状态和胆汁酸稳态间接影响脑功能。
奥贝胆酸是 FXR 激动剂,已获批用于原发性胆汁性胆管炎。它在代谢性肝病中的研究提示,胆汁酸受体调节可影响全身代谢和炎症状态。但奥贝胆酸也存在瘙痒、血脂变化等安全性和耐受性问题,因此不能简单外推到认知老化干预。
目前,胆汁酸受体调节剂在神经退行性疾病和认知老化中的应用仍处于早期阶段。更稳妥的方向可能包括:通过饮食、益生元、胆汁酸代谢菌群调节和选择性 TGR5/FXR 调节剂,改善胆汁酸谱和慢性炎症状态。未来需要更多人体研究来确认其认知获益和长期安全性。
神经通路辅助干预:恢复肠—脑轴信号传递
迷走神经是最值得关注的神经通路。它连接肠道和脑干,并进一步影响海马、下丘脑和边缘系统等与记忆、情绪和应激反应相关的脑区。
在衰老和菌群失调状态下,肠道炎症增加、屏障功能下降以及异常微生物代谢物升高,可能削弱迷走神经传入信号,使大脑对肠道内感受信息的响应下降,进而影响海马神经活动和记忆功能。
因此,恢复迷走神经功能被认为是潜在的辅助干预方向。传统迷走神经刺激和经皮耳迷走神经刺激等方式,已在情绪、炎症和认知相关研究中受到关注,可能通过增强副交感神经活性、降低炎症反应和调节胆碱能信号影响脑功能。
不过,目前这类方法仍属于探索性干预,尚不能作为认知衰老的标准治疗。
此外,肠道菌群还可能通过影响 5-羟色胺、GABA、多巴胺和胆碱能系统参与脑功能调节。但这些作用多是间接发生的,通常依赖前体代谢、肠内分泌细胞、免疫炎症状态、迷走神经活动和屏障功能,而不是肠道神经递质直接进入大脑。
总体来看,神经通路干预的价值在于为菌群代谢、外周炎症和脑功能变化提供一个可调节的连接点。
高膳食纤维饮食:菌群健康的基础
如果要从一个最基础的饮食策略开始,那一定是增加膳食纤维。膳食纤维是肠道菌群的重要能量来源。充足的膳食纤维摄入,可以帮助维持菌群多样性和代谢活性,并促进产短链脂肪酸菌生长。
一般建议每日摄入约25–30克膳食纤维,来源可以包括:全谷物、豆类、蔬菜、水果、坚果和种子。
不同类型的纤维,会被不同菌群利用。例如:
燕麦、香蕉、洋葱、大蒜、芦笋等食物富含低聚果糖和菊粉,是双歧杆菌和乳酸杆菌喜欢利用的底物。
编辑
全谷物中的β-葡聚糖可以促进产丁酸细菌生长。
豆类中的抗性淀粉经过肠道菌群发酵后,也可以产生较多短链脂肪酸。
一些干预研究显示,增加膳食纤维摄入数周后,肠道菌群组成就可能发生明显变化,产短链脂肪酸细菌丰度增加,系统性炎症标志物下降,认知测试表现也可能出现改善。
从长期来看,坚持高纤维饮食的老年人,认知衰退速度可能更慢。
但需要注意的是,增加纤维要循序渐进。突然大量增加豆类、全谷物或菊粉类食物,可能引起腹胀、排气增多或肠胃不适。可以逐步增加,比如先把部分精米白面换成全谷物,再增加豆类、蔬菜和坚果摄入,让肠道菌群有适应过程。
地中海饮食:证据较充分的饮食模式
在认知健康相关饮食模式中,地中海饮食的证据相对最充分。
多项大型前瞻性队列研究显示,坚持地中海饮食模式的人群,认知衰退速度更慢,痴呆风险降低30%-50%。
地中海饮食的核心并不复杂,主要包括:
编辑
这种饮食模式富含膳食纤维、多酚、不饱和脂肪酸和抗氧化成分。
从肠道菌群角度看,地中海饮食可以增加一些与短链脂肪酸产生和抗炎作用相关的有益菌,例如 Roseburia、Faecalibacterium 等,并提高粪便和循环中的短链脂肪酸水平,从而减轻系统性炎症。多酚类化合物,是地中海饮食发挥作用的重要成分之一。
橄榄油中的橄榄苦苷、浆果中的花青素、姜黄中的姜黄素、葡萄中的白藜芦醇等,都具有抗氧化和抗炎潜力。
坚果:小份量也可能带来认知保护
坚果是饮食干预中比较容易执行的一类食物,也有较多流行病学和机制研究支持。
Ni et al.(2025)在747名社区老年人中进行的前瞻性队列研究提供了高质量证据,研究显示,每周食用3–7份坚果的老年人,在长期随访中整体认知功能下降速度更慢。
与不食用坚果的人相比,每周食用3份及以上坚果者,认知衰退风险明显降低。
这种认知益处可能与肠道菌群变化有关。
研究中,坚果消费组Lachnospiraceae UCG-004、Roseburia 和 Flavonifractor等菌群富集,整体微生物多样性更高,粪便短链脂肪酸水平也更高。
降解多酚黄酮的肠道重要菌——Flavonifractor,能促进痛风、抑郁也能改善便秘肥胖
机制研究提示,坚果中的多酚和不饱和脂肪酸共同作用,塑造了有益于大脑健康的肠道微环境。坚果中的精氨酸还可以转化为一氧化氮,改善脑血流。维生素E和硒等抗氧化成分则直接保护神经元免受氧化损伤。
推荐每日食用一小把坚果(约25-30克),种类多样化更佳:核桃富含ω-3脂肪酸,杏仁和腰果富含多酚,开心果富含叶黄素,花生富含白藜芦醇,各有侧重。
需要注意的是,坚果能量密度较高,最好选择原味、少盐、少糖、不过度油炸的类型。如果已经有肥胖、脂代谢异常或肾脏疾病等问题,摄入量应结合个人情况调整。
生酮饮食:有潜力,但争议也很明显
生酮饮食的证据相对复杂,存在明显的争议。该饮食通过极低碳水化合物、高脂肪摄入诱导酮症,使大脑主要依靠酮体供能。
在癫痫治疗中,生酮饮食已有近百年的应用历史。
从菌群角度看,生酮饮食显著改变肠道菌群组成,增加Bacteroides丰度,减少Firmicutes。这种菌群变化与免疫反应调节相关,可能部分解释生酮饮食的抗癫痫作用。
在认知领域,小型临床试验显示生酮饮食可以轻度改善轻度认知障碍和早期阿尔茨海默病患者的认知功能。酮体可能为受损的神经元提供替代能源,同时减少氧化应激和炎症。
但生酮饮食的高脂肪特性也可能加剧肠道菌群失调,长期使用的安全性尚未得到充分验证。可能的风险包括营养不均衡、血脂异常、肾结石风险增加等。对于老年人,还需要考虑吞咽困难和消化功能下降等问题。
目前来看,生酮饮食可能适用于特定人群的短期干预,但作为长期的认知保护策略仍需更多研究支持。个性化的生酮方案,如周期性生酮或改良生酮,可能平衡收益与风险。
注:如果要执行需要在专业指导下进行,而不是自行长期严格执行。
其他饮食模式与认知健康
▾
MIND饮食:可以理解为DASH饮食(停止高血压饮食法)与地中海饮食的结合,专门为大脑健康设计,已被证明可以降低阿尔茨海默病风险。
DASH饮食原本用于帮助控制高血压,而MIND饮食则进一步强调与认知保护相关的食物,例如绿叶蔬菜、浆果、坚果、全谷物、豆类、鱼类和橄榄油。它的优势在于执行逻辑清楚,既关注心血管代谢健康,也强调大脑友好的植物性食物和抗氧化成分。
▾
间歇性禁食作为近年来热门的饮食模式,在动物实验中显示出显著的认知改善作用。
隔日禁食、限时进食等模式可以调节肠道菌群组成,增加菌群节律性,促进短链脂肪酸产生。
注:如果存在低血糖风险、营养不良、消瘦、胃肠疾病、糖尿病用药或进食障碍史,就不宜自行尝试严格禁食。
更温和的方式,可能是避免夜间过晚进食,保持相对规律的进餐时间,而不是追求极端断食。
▾
发酵食品也是值得关注的一类食物。酸奶、泡菜、纳豆、味噌等传统发酵食品,是天然微生物和发酵代谢产物的来源。发酵食品在人类饮食历史中占有重要地位,它们不仅延长了食物保存时间,也可能提高营养价值和生物活性成分。
定期摄入发酵食品,可能有助于增加肠道菌群多样性,补充部分有益微生物,并与更好的免疫调节状态有关。
不过,发酵食品也要注意选择。优先选择低盐、低糖、少添加的产品。尤其是泡菜、咸菜、味噌等高盐发酵食品,不能因为发酵就不限制摄入。
总的来说,饮食是调节肠道菌群和支持认知健康最基础、最安全、也最容易长期坚持的方式。高纤维饮食、地中海饮食、坚果摄入、MIND饮食和适量发酵食品,都是相对更值得优先考虑的方向。需要长期建立一个高纤维、多植物、低炎症、低加工、可持续的饮食模式。
生活方式是影响肠道菌群和大脑健康的另一个重要维度。运动、睡眠和压力管理不仅直接影响大脑功能,也通过肠道菌群发挥作用。
运动:菌群重塑与认知增强
有氧运动可以显著改变肠道菌群组成,增加菌群多样性,提高产短链脂肪酸细菌的丰度。无论是耐力运动还是力量训练,都对肠道菌群产生积极影响。
运动促进肠道蠕动,改变肠道环境的物理和化学特性,为不同菌群创造适宜的生存条件。运动还通过增加血流和调节免疫反应间接影响菌群。这些变化共同促进了菌群向更健康的方向发展。
动物实验显示,运动可以增加Lachnospiraceae、Ruminococcaceae、Bacteroidetes的丰度,这些变化与认知功能改善相关。
在人体研究中,长期坚持运动的人群菌群多样性更高,产丁酸菌丰度显著增加。
推荐每周至少150分钟中等强度有氧运动,配合2-3次力量训练。运动方式应多样化,包括快走、跑步、游泳、骑行等。即使是轻度运动,如每日散步30分钟,也能对菌群产生积极影响。
睡眠:菌群节律与认知巩固
睡眠与肠道菌群之间存在双向调节关系。睡眠质量影响菌群组成和代谢活性,而菌群代谢产物反过来调节睡眠质量和昼夜节律。
睡眠剥夺导致菌群多样性下降,促炎细菌增加,产短链脂肪酸细菌减少。这些变化可能通过炎症途径影响认知功能。反过来,菌群失调产生的代谢信号也可能干扰睡眠调节,形成恶性循环。
肠道菌群具有自身的昼夜节律,这种节律与宿主的睡眠-觉醒周期同步。菌群节律的破坏可能影响褪黑素等睡眠调节激素的合成和释放,进而影响睡眠质量和认知功能。
改善睡眠质量的策略包括:
睡眠质量的改善不仅直接有益于认知功能,也通过菌群途径发挥保护作用。
压力:打破脑-肠恶性循环
慢性压力是肠道菌群和大脑健康的重要威胁。压力通过HPA轴释放皮质醇,改变肠道通透性和菌群组成,而菌群失调反过来加剧压力反应和焦虑症状。
压力-菌群失调-炎症-认知损害
压力导致的菌群特征包括:菌群多样性降低,Lactobacillus和Bifidobacterium等有益菌减少,促炎细菌增加。这些变化增强了肠道的炎症反应,削弱了屏障功能。
编辑
正念冥想、瑜伽、深呼吸训练、渐进性肌肉放松等压力管理技术可以有效降低压力水平,改善菌群状态。这些技术通过调节自主神经系统和HPA轴活动,减轻压力对肠道和大脑的负面影响。
社会支持也是压力管理的重要组成部分。良好的人际关系和社会联系可以缓冲压力的影响,保护菌群多样性和认知功能。孤独和社会隔离则会加剧压力反应,对菌群和大脑产生不利影响。
每个人的肠道菌群并不一样。有些人本身产短链脂肪酸菌较少,可能对高纤维饮食反应更明显;有些人促炎菌群较多,可能需要先降低炎症;还有些人菌群整体状态不错,可能只需要调整生活方式,不一定需要复杂干预。
这也是精准微生态医学出现的原因。核心是根据个体菌群特征、遗传背景、代谢状态、炎症水平和生活方式,制定更适合个人的干预策略。
基线菌群分层:先看属于哪一类
精准干预的第一步,是了解一个人的基线菌群。
所谓基线菌群,就是在干预开始前,个体肠道菌群原本的组成和功能状态。
这一步非常重要。比如说,基线菌群中产短链脂肪酸细菌丰度较低的个体,可能从高膳食纤维饮食中获得最大益处。而Parabacteroides丰度较高的个体,可能更适合噬菌体靶向治疗、GPR84抑制剂,或者其他针对下游炎症通路的方式。
编辑
当然,这些方法目前很多还处于研究阶段,并不是常规临床方案。
基线菌群的炎症潜能也是重要考量因素。如果一个人的菌群整体偏促炎,肠屏障受损明显,LPS等炎症相关信号较高,可能需要优先控制炎症、改善屏障功能,再考虑菌群重建。而如果菌群状态相对稳定,炎症水平不高,可能通过饮食、运动、睡眠和压力管理,就能获得较好的改善。
未来,随着机器学习和微生物组数据积累增加,研究者可能会把人群分成不同菌群亚型,并为不同亚型匹配更可能有效的干预方案。这种思路已经在肿瘤免疫治疗、代谢疾病等领域显示出价值,在认知健康领域也值得期待。
多组学整合的精准诊断
单看菌群组成,往往不足以指导精准干预。因为知道有哪些菌,并不一定等于知道这些菌正在做什么。因此,未来更有价值的方向,是把菌群和多组学数据结合起来。
例如,宏基因组测序可以告诉我们,菌群具备哪些功能潜能:它们可能合成哪些代谢物,具有哪些酶活性,参与哪些信号通路。
代谢组学则可以进一步反映菌群实际产生了什么,以及宿主身体如何响应这些代谢变化。
除此之外,还可以结合血液炎症标志物、神经递质相关指标、激素水平、认知测试结果、脑影像数据和遗传风险评分。
这些信息放在一起,可以更完整地判别一个人的肠-脑轴状态。
例如,一个人可能菌群多样性不算差,但炎症标志物偏高、TMAO水平较高、睡眠差、认知测试表现下降。另一个人可能菌群多样性较低,但炎症不明显,主要问题是膳食纤维摄入不足。
这两类人显然不应该采用完全相同的干预方案。
因此,精准微生态医学未来的方向,是建立一个多维度模型。不过,多组学整合也不是一件简单的事。它需要生物信息学分析、机器学习算法和足够大的数据库支持。随着测序成本降低和分析工具成熟,未来5–10年,多组学整合诊断有望逐步进入更多临床和健康管理场景。
动态监测与适应性调整
肠道菌群不是固定不变的。它会受到饮食、睡眠、压力、药物、感染、运动和年龄变化的影响。因此,单一时间点的检测,很难代表一个人的长期菌群状态。
这也是为什么精准微生态医学强调动态监测。通过定期采样和连续评估,可以观察菌群是否真的对干预产生反应,也可以及时调整方案。
比如,一个人开始补充益生菌后,4周过去了,菌群组成和相关代谢物并没有明显变化。这时就可能需要重新评估:是不是剂量不合适?是否缺少膳食纤维作为底物?是否存在长期睡眠不足或压力过大,抵消了干预效果?
如果只做一次检测,就很难发现这些问题。肠道菌群检测是非侵入性的,操作相对方便,受检者可以在家完成粪便采样,再寄回实验室进行分析。这样是适合后续做阶段性复测,观察菌群变化趋势。
未来,随着居家检测和可穿戴设备发展,动态监测可能会变得更容易,可以帮助人们在家中完成部分监测,降低检测成本和负担。
可穿戴设备还可以记录睡眠、心率变异性、活动量和压力相关指标,与菌群和代谢数据结合后,形成更完整的健康画像。
闭环干预
基于实时监测数据的闭环干预系统是未来的发展方向。该系统可以自动分析监测数据,预测认知变化趋势,推荐个性化的饮食、运动和补充方案,形成”监测-分析-干预-再监测“的闭环管理。
未来,人工智能和机器学习可能会参与这类闭环系统,自动分析监测数据,预测认知风险变化趋势,并给出更个体化的干预建议。当然,这仍然是未来方向,目前还不能替代专业医疗判断。
精准干预更适合用于例如认知下降风险较高、已有轻度认知障碍、存在明显炎症或代谢异常、肠道症状较多,或者普通生活方式调整效果不明显的人。它的意义是减少盲目干预。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Chen, Z., Bao, W., Su, J., Wu, X., Tan, Y., & Yang, X. (2026). Research on gut microbiota and metabolic characteristics in patients with sleep disorders after ischemic stroke. Metabolic Brain Disease, 41, 114.
Cox, T. D., Devason, A. S., de Araujo, A., et al. (2026). Intestinal interoceptive dysfunction drives age-associated cognitive decline. Nature, 652, 442-450.
Ma, X., Liu, J., Jiang, L., et al. (2025). Dynamic changes in the gut microbiota play a critical role in age-associated cognitive dysfunction via SCFAs and LPS synthesis metabolic pathways during brain aging. International Journal of Biological Macromolecules, 304, 140945.
Surajit Pathak, Antara Banerjee, et al.(2024). Gut Microbiome and Brain Ageing,Brain Aging, April.
Ni, J., et al. (2025). Nut consumption, gut microbiota and cognitive function in older adults at high cardiovascular risk. Age and Ageing, afaf208.
Shen, H., Wang, S. Y., Zhao, Y. Y., Zhou, J. L., Zhao, J., & Zhu, W. K. (2026). Brain-gut-microbiota axis: a review on the bidirectional regulatory mechanisms between gut microbiota and brain and their disease interactions. Frontiers in Microbiology, 17, 1768891.