-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
随着研究微生物组的需求越来越旺盛,用于微生物组数据分析的平台也越来越多。分享两款最新的微生物组数据分析平台。
能够处理来自NGS平台的数据,包括Illumina MiSeq,Illumina HiSeq或Illumina NovaSeq,还可以处理以前的454焦磷酸测序技术。CoMA着重于短读而非长读的数据处理。
处理过程包括数据预处理、质量检查、对操作分类单元(OTUs)的聚类、分类、数据后续处理、数据可视化和统计评估。输出结果包含可供发表的图形和标准化格式的文件(例如,制表符分隔的OTU表、biom、Newick tree)。
比起qiime,它的下载安装没那么复杂,兼容linux、mac、windows系统,并且交互式的用户界面更方便小白上手。
性能评估方面,使用了模拟数据和真实的土壤数据与现流行的Mothur、QIIME和QIIME2软件进行了比较,其结果是一致的。
Coma的交互界面
$ coma
如同回答问题般的操作
“Do you want to start a new project?” → Yes
“Do you want to assign your files and choose the number of CPUs?” → Yes
“Are you using paired-end reads?” → Yes
工作流程
使用了各种开源的第三方工具,并以Bash脚本的形式将它们组合到了线性分析工作流程中,从原始输入文件(以FASTQ格式)开始。
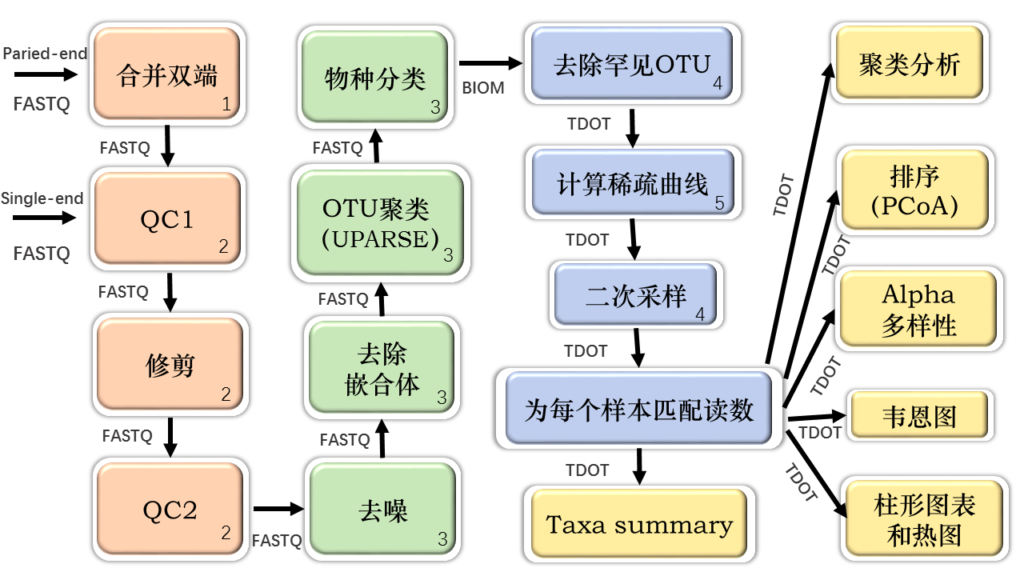
不同的颜色代表CoMA工作流程的四个子部分:数据预处理和质量检查(橙色),OTU的聚类和物种分类(绿色),数据后处理(蓝色)以及数据可视化和统计分析(黄色)。
箭头指示发生的顺序,并指定了每个步骤的输入所需的文件类型。通过BLAST、LAMBDA或RDP使用任一可用数据库完成物种分类(例如Sliva或用户自定义数据库)。
数字表示用于特定CoMA步骤的第三方工具:1 = PANDAseq,2 = PRINSEQ,3 = LotuS / sdm,4 = QIIME,5 = Mothur。TDOT =制表符分隔的OTU表
模拟社区群落数据测试
来自公共模拟微生物库。选择了3个数据集分别为MOCK-13、MOCK-16、MOCK-26.。Mock-13包含21个细菌菌株(18个属;三个重复),MOCK-16包括古细菌,共59个菌株(46属;三个重复),Mock-26包含来自11个真菌菌株(11属)的ITS数据。
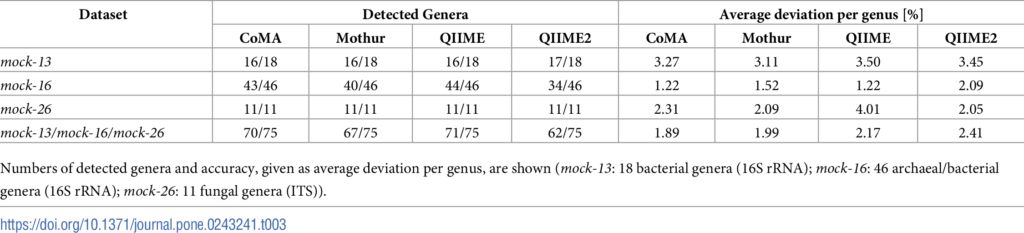
表1展示了四个不同分析平台的基准测试结果:使用CoMA进行的数据分析揭示了18个属中的16个,与Mothur和QIIME数量一致。

综合所有模拟社区,CoMA表现出总体最高的准确性,每个分类单元的平均偏差为1.89%(表1),而Mothur(1.99%),QIIME(2.17%)和QIIME2(2.41%)。从层次聚类分析来看,CoMA和QIIME2显示最小的余弦距离(0.08)。Mothur的距离为0.11,QIIME的距离为0.12。所有四个管线之间的相互关系比估计值更紧密(总余弦距离:0.18)。
土壤微生物数据集测试
(森林F、草地GR、沼泽S)

Shannon-Wiener多样性。字母表示不同栖息地使用的分析工具之间的显著差异。三种分析工具都显示出了不同水平的Shannon-Wiener多样性,Mothur>QIIME>CoMA


主成分分析结果表示CoMA和QIIME分析得到的微生物群落具有更高的相似性。
韦恩图也显示出相似的结论,无论是哪个分类水平,Mothur分类得到的OTU数目都是最少的,CoMA和QIIME分类得到的一样的OTU的数目最高。

分析了三个土壤类型的关键科水平物种(即丰度>5%的序列)。在表格中被列举出来的关键科水平物种中,无论土壤类型为哪个,三种分析工具都确定了6个关键科。
另一方面,Mothur确定了在CoMA和QIIME中都找不到的4个关键科,CoMA和QIIME再次确定了相同的分类单元(18个中的14个)

在森林、草原和土壤中的每个分类水平的未分类读数。CoMA和QIIME在所有分类水平上的表现都相似。但是,在分析草地时,CoMA会发现更多的Order和Family(分别为5%和+ 3%; p <0.001)。
总体而言,CoMA的表现与Mothur和QIIME相当,在微生物多样性分析和分类学分类上导致的差异,文章中也做出了相应解释,这通常与算法、参考数据库、参数选择有关。
CoMA的主要优点是图形用户界面支持的直观且用户友好的操作。它使入门级用户无需进行费时费力的培训即可执行扩增子测序数据分析并获得可靠的结果。CoMA还提供了随时停止未完成的分析以稍后再继续或重新计算部分工作流的可能性。通过简单地调整决定性的输入参数,而无需进行完整的重新计算。未来,CoMA将会支持ASV结果输出。
一款用于研究微生物群与宿主表型数据关系的分析软件,可以本地安装也可在线使用。可以是16SrRNA测序数据,也可以是宏基因组数据。
软件自建了一个微生物组合表型数据的综合数据库,用户能够共享或存储自己的数据,通过数据库和相关分析脚本该可以清楚地展示微生物组和表型数据(例如生活方式等)之间的相关性。依旧是交互式界面,但这个更直观,可以本地安装也可以在线使用。
用户界面

详细手册:https://mizuguchilab.org/manta/manta-tutorial.html
操作类似于MicrobiomeAnalyst这种平台,非常好上手。具体怎么操作就不赘述了,主要看看这款软件在表型数据的分析中表现怎么样。
案例研究
脂肪摄入量与微生物群之间的相关性
数据来源于NIBIOHN队列数据,20名健康成年志愿者(21-41岁,男性)
首先,使用基于OTU的Bray-Curtis距离进行PCoA分析,以评估志愿者之间的相似性。可以通过勾选感兴趣的表型数据进行分组分析,比如图中的abc分别勾选了“食用油”、“脂肪”和“ω-6多不饱和脂肪酸”,然后计算Spearman相关系数,搜索与“脂肪”相关的肠道菌群。
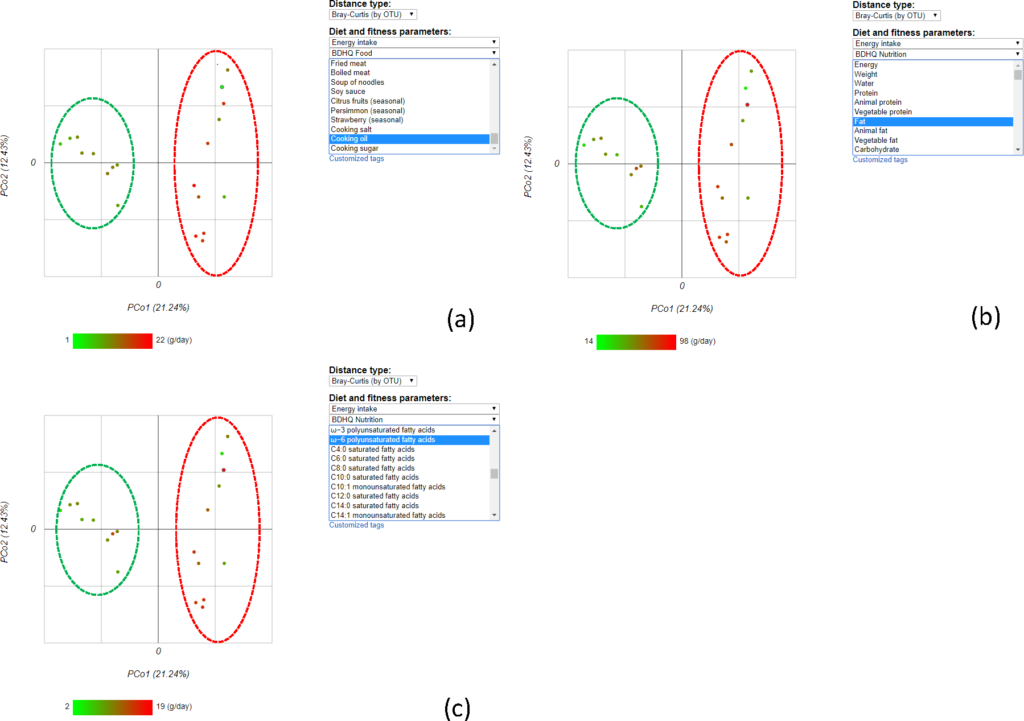

这项分析表明,Lachnospiraceae与脂肪摄入量呈正相关。Lachnospiraceae由丁酸产生菌组成,据研究,低碳水化合物摄入量的高脂肪饮食与Lachnospiraceae和Ruminococcacea的丰度比有关。根据这些结果,推测Lachnospiraceae和Ruminococcacea的比例主要受饮食,特别是脂肪摄入量的影响。
然后反过来,探讨与Lachnospiraceae菌相关的其它表型数据。观察到:
(a)与单不饱和脂肪酸或饱和脂肪酸摄入量呈正相关;
(b)与体育活动时间相关的参数呈负相关;
与Ruminococcaceae菌相关的其它表型数据,观察到:
(c)与ω-6多不饱和脂肪酸摄入量呈正相关;
(d)与体重、总能量消耗、碳水化合物摄入(如煮熟的大米和谷物)等身体成分相关的参数呈负相关。
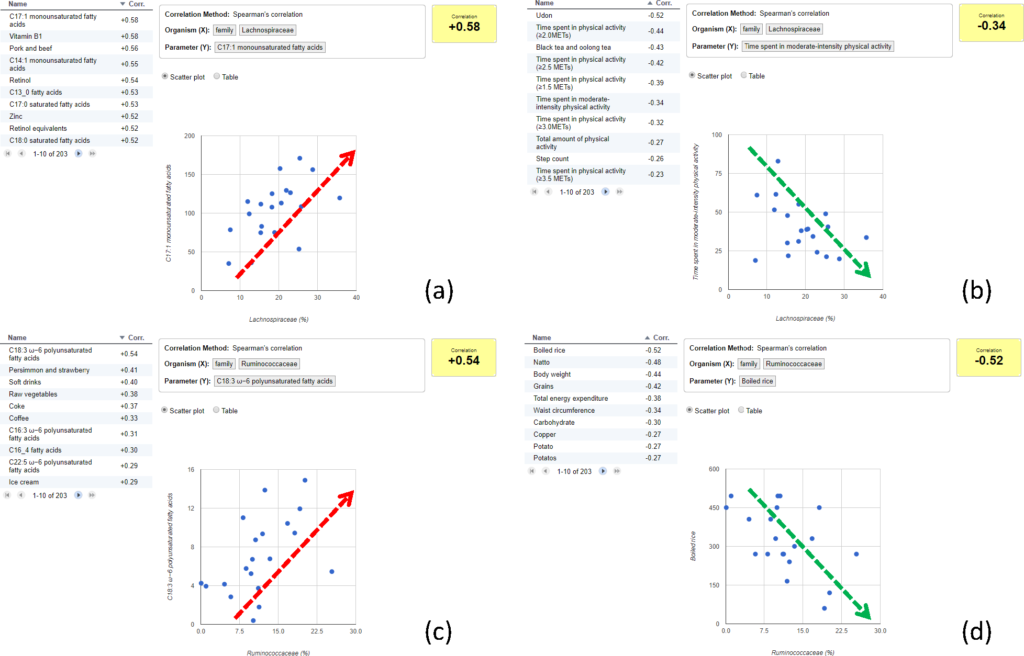
使用MANTA分析出的结果与案例中的结果一致,不同类型的脂肪酸会分别影响Lachnospiraceae和Ruminococcacea。这表示MANTA成功的假设了微生物群和生活方式之间可能存在的联系。
基于以上,我认为MANTA是一个不错的辅助分析工具, MANTA还提供了一个更加简易的版本MANTA BASIC, 输入的文件也比较简单,OUT表和含表型数据的制表符格式文件。
延 伸
软件开发拥有一套复杂的流程。从提出问题,编写方法、开发,然后是一系列的测试,通常包含基准测试、模拟数据的测试、真实的生物数据的测试。每一步都需要经过严格的控制,包括要使用哪些数据,要应用哪种性能指标以及要采用哪种基准。最后整理成文档,将方法放置在软件包或插件中,开放存取,持续的测试更新和版本控制等。复杂但也有逻辑可寻。如果你在开发方面感兴趣,可以阅读这篇文章“Measuring the microbiome: Best practices for developing and benchmarking microbiomics methods”,它详细的介绍了开发用于微生物研究的软件或方法的一套流程,可以说是一篇指南。
工具的选择应该基于解决什么样的问题。对于CoMA,如果你觉得用qiime太困难了,可以试试CoMA,这种非命令式的交互界面还是很好理解的,从案例研究的结果来看,与qiime的结果几乎一致。虽然是新开发的软件,但较为内核的算法借鉴或直接使用了老牌的工具。
MANTA是个研究表型数据与微生物相关性的方便好用的软件,比起自己写代码和调试,这个可以直接上手,很方便。
相关阅读:
谷禾健康
感觉疲惫?沮丧?容易出汗?经常感冒?免疫力下降?骨痛?脱发?…
这些都可能与维生素D缺乏有关。
维生素D对人体健康很重要。然而流行病学研究表明,全世界近十亿人口受维生素D缺乏症的影响。
一项针对北京和上海50-70岁人群调查显示:
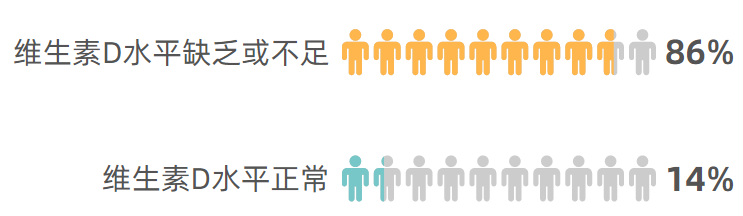
注:VD水平缺乏(低于20ng/ml);VD水平不足(低于30ng/ml)
首先我们来看下维生素D在人体中扮演怎样的角色。
维生素D
· 维生素D是脂溶性维生素
· 参与钙和磷的吸收,骨骼健康以及肌肉的生长和发育(生理过程)
· 刺激肌肉细胞的增殖和分化(影响肌肉系统)
· 其充足的供应可预防呼吸道感染,间接参与具有抗生素特性的化合物的生产(免疫系统)
· 其最佳含量对皮肤的状况和健康以及男性和女性生殖过程的调节都有积极的作用(皮肤)
为什么会有这么多人出现维生素D缺乏?
1. 饮食摄入和/或吸收减少
某些吸收不良综合症,如腹腔疾病,短肠综合症,胃搭桥,炎性肠病,慢性胰腺功能不全和囊性纤维化,可能导致维生素D缺乏。老年人中口服维生素D摄入量较低的情况更为普遍。
2. 减少阳光照射
大约50%-90%的维生素D通过阳光通过皮肤吸收,其余的来自饮食。为了防止维生素D缺乏,每天需要20分钟的阳光照射,皮肤暴露在40%以上。维生素D的皮肤合成随着年龄的增长而下降。黑皮肤的人皮肤维生素D的合成较少。在住院或长期住院的患者中减少的日光照射也会导致维生素D缺乏。持续使用防晒霜的人的有效日晒量降低。
3.内源性合成减少
患有慢性肝病(例如肝硬化)的个体可能具有缺陷的25-羟化作用,导致活性维生素D缺乏。1-α25-羟化作用的缺陷可见于甲状旁腺功能亢进,肾衰竭和1-α羟化酶缺乏症。
4.肝分解代谢增加
某些yao物会诱导肝p450酶,从而激活维生素D的降解。
5.维生素D 抵抗
在遗传性抗维生素D佝偻病中可以看到维生素D受体抵抗。
维生素D缺乏症的大多数患者无症状。
轻度的慢性维生素D缺乏症,也可能会导致慢性低钙血症和甲状旁腺功能亢进,特别是在老年人群中,可能导致骨质疏松,跌倒和骨折的风险。
长期严重维生素D缺乏症患者会出现与继发性甲状旁腺功能亢进有关的症状,包括骨痛,关节痛,肌痛,疲劳,肌肉抽搐(束缚)和无力。脆性骨折可能是由于长期缺乏维生素D导致骨质疏松所致。
在儿童中可能产生的症状:烦躁,嗜睡,发育迟缓,骨骼变化或骨折等。
其他一些症状可能会被忽视,其实也与维生素D缺乏有关,例如:
感到疲惫,免疫力下降,反复感染,容易出汗,脱发,伤口愈合慢,头晕,心脏问题,超重或肥胖,情绪低落,认知功能障碍等。
25(OH)D是血中维生素D的主要存在形式, 而且血清或血浆中25(OH)D受机体调节的影响较小, 可以在较长时间内维持稳定,可以体现膳食摄入维生素D和阳光维生素D的总量,这是评估维生素D水平是否正常的首选临床措施。
临床上,血清25(OH)D水平标准如下:
足够: 大于20–30 ng/ml 或50–75 nmol/L
安全上限: 不超过60 ng / ml 或 150 nmol/L
有毒: 高于150 ng/mL 或 375 nmol/L
毒 副 作 用
高维生素D水平是由于过量摄入而不是由于过度日光照射引起的。
急性中毒可导致急性高钙血症,可引起混乱,厌食,呕吐,多尿,多饮和肌肉无力。
慢性中毒可导致肾钙化和骨痛。
维生素D缺乏与许多非传染性疾病的发生有关,如结肠癌,乳腺癌,卵巢癌,肾癌,胰腺癌,精神分裂症,阿尔茨海默,多发性硬化,骨软化症,佝偻病,骨质疏松,糖尿病等。
4.1 呼吸道疾病
一些研究表明,维生素D补充剂可以增强免疫反应并预防呼吸道感染。
一项来自14个国家/地区的11,321人的研究表明,补充维生素D可以使维生素D缺乏和适当水平的人降低急性呼吸道感染(ARI)的风险。
来自三项随机对照试验的Meta分析研究中,发现补充维生素D可以降低维生素D水平低于25 nmol / L的患者慢性阻塞性肺疾病恶化率。
4.2 新 冠 肺 炎
与呼吸道疾病相关的,例如COVID-19。
最近的一项研究表明,血液中25(OH)D的浓度至少为30 ng / mL有助于住院的COVID-19患者减少临床预后不良和死亡的可能性。
研究分析了235例COVID-19患者的住院资料。与维生素D缺乏症患者相比,在40岁以上的患者中,维生素D含量适当的患者发生不良后果(包括失去知觉,缺氧和死亡)的可能性降低51.5%。
在疫情期间,我们可能常听到这样的词:“细胞因子风暴”。而维生素D缺乏会增强细胞因子风暴的过程。
注:细胞因子是蛋白质,是免疫系统不可或缺的一部分。它们可以同时具有促炎和抗炎作用,并发挥重要作用,有助于预防感染和疾病。但是,在某些情况下,细胞因子也会引起组织损伤。
细胞因子风暴是指响应感染或其他因素而发生的促炎性细胞因子的失控释放。细胞因子的这种失调和过度释放会导致严重的组织损伤,并增强疾病的进展和严重程度。
细胞因子风暴是导致多器官功能衰竭和急性呼吸窘迫综合征(ARDS)的主要原因,也是导致COVID-19进程和严重程度的重要因素。例如,已显示严重病例COVID-19的患者释放大量细胞因子,尤其是IL-1和IL-6。
维生素D缺乏与免疫功能降低有关,并可能增强细胞因子风暴。当然该领域还在研究中。
需要特别注意,单独服用补充维生素D并不能让你免受COVID-19的侵害。不过,缺乏维生素D可能会损害免疫功能,从而增加感染风险和对疾病的敏感性。
4.3 自 闭 症
自闭症是遗传和环境因素共同作用导致的神经发育异常,自闭症人群中维生素D的缺乏较常见,而维生素D能够促进儿童的大脑神经发育,因此可能在自闭症的病因学上起着重要作用。
采用随机双盲对照临床试验(RCT)设计,纳入109名自闭症儿童(85名男孩和24名女孩;年龄为3-10岁)。将自闭症患儿随机分组,分别接受维生素D3或安慰剂治疗4个月。结果发现,自闭症儿童可很好地耐受高剂量的维生素D3,且临床疗效较好。
这项研究是第一个证明维生素D3补充剂有益于自闭症患者的随机双盲对照试验,但是仍需更大规模的随机对照试验来严格验证维生素D对自闭症患者的疗效。
4.4 癌 症
对包括57,000多名受试者的18项随机对照试验(RCT)进行的荟萃分析发现,每天摄入维生素D补充剂可降低总死亡率。补充钙和维生素D降低了罹患总癌症,乳腺癌和结直肠癌的风险。
一项RCT显示,钙和维生素D可以大大降低绝经后妇女的所有癌症风险。
近几年来的人群研究还发现,机体维生素D水平与肠道菌群之间也存在密切联系。
生命早期生长发育与维生素D有关
我们知道,婴儿在出生6 个月内身体生长发育迅速,所以需要充足的营养。维生素D 缺乏是婴儿早期营养不足的主要原因之一,维生素D 补充不足会严重影响婴儿的骨骼发育。
有研究显示,婴儿体重与维生素D 缺乏具有明显关联性。婴幼儿缺乏维生素D 也会影响肠道菌群的定植能力和数量平衡,导致消化系统功能失调造成吸收功能障碍。
婴儿期肠道菌群数量的改变受多种因素影响。研究显示,维生素D可通过信号传导来增强肠道结构屏障的完整性和提高肠道免疫反应能力,进而稳定菌群在肠道的定植和数量平衡。
婴儿在1 岁以内是肠道内菌群定植、演替和达到平衡的主要阶段,特别是肠道内双歧杆菌、大肠杆菌、乳杆菌等主要菌体在婴儿出生半年内完成定植、演替和数量的平衡,对增强机体免疫力和促进消化吸收起到了重要作用。
在最近对3-6 个月大的婴儿肠道微生物群的研究中,研究人员发现脐带血维生素D 水平与乳球菌减少有关。
正常成年人补充维生素D 后,普氏菌属(Prevotella)的丰度随维生素D 的摄入量增加而增加,嗜血杆菌(Haemophilus)和韦荣氏球菌(Veillonella)的丰度随维生素D 的摄入量增加而降低,粪球菌属(Coprococcus)和双歧杆菌属(Bifdobacterium)的丰度与血清25-OH-D 水平呈负相关。
上述资料表明从婴儿期到成人期,维生素D 对肠道菌群的组成具有调节作用。
维生素D减少与肥胖有关
有研究显示,饮食中类固醇类物质的缺乏会影响肠道菌群的定植和平衡状态,使菌群数量明显增加,可能与肥胖的发生均有一定关系,但仍需进一步研究证实。
维生素D 还可促进脂肪细胞内Ca2 + 的吸收,使脂肪酸合成酶的活性增强进而减少脂肪的分解,增强脂肪细胞的储脂能力。所以体内维生素D 含量减少时,体内脂质代谢会明显增强和细胞内储脂能力降低,导致肥胖发生。
国内学者发现,超重和肥胖患者血清中维生素D 水平明显低于正常水平,且维生素D 与BMI 和腰围指标呈独立负相关性。
维生素D 缺乏的婴儿体重和BMI 指标明显高于维生素补充充足的婴儿。肠道菌群数量的增加与肥胖具有密切联系,特别是乳酸杆菌和双歧杆菌以及肠球菌能增加体重和引起肥胖。
该研究发现,观察组婴儿补充维生素D 后乳酸杆菌、双歧杆菌、肠球菌含量明显低于对照组。
活性维生素D代谢产物
多项研究表明,肠道菌群会改变肠道维生素D的代谢,而益生菌补充剂会影响循环中的维生素D水平。维生素D缺乏会降低防御素的生成,防御素是一种对于维持健康肠道菌群非常重要的抗菌分子。正如研究人员期待的那样,口服合成防御素分子能够恢复肠道菌群平衡,降低血糖水平,并改善脂肪肝症状。
最近Nature Communications上发表的一项横断面研究,对567名老年男性的血清维生素D代谢产物及粪便菌群进行深入分析后发现,8种特定肠道细菌分类群与维生素D活性形式——1,25(OH)2D的水平相关,而更高的1,25(OH)2D水平与更健康的肠道菌群(更多的丁酸盐产生菌)相关。同时,1,25(OH)2D水平较高的男性具有更大的多样性。
这些结果提供了强有力的证据,表明宿主维生素D信号和老年人肠道菌群健康之间存在重要的相互作用。肠道中CYP27B1-和CYP24A1-24-羟化酶的共定位表达可能会被存在的微生物群增强或抑制。
无论是通过饮食干预和/或在临床上给合适的人群补充维生素D,发现与更有利的肠道微生物多样性相关的活性维生素D代谢产物(包括已知的丁酸盐生产者的特定微生物)可能会为临床提供潜在的干预目标。
自闭症儿童维生素D水平较低现象
大量研究证实,自闭症儿童的维生素D 水平低于同龄健康人群,并且足量、规范地补充维生素D 可改善其自闭症核心症。
动物实验研究表明,发育早期维生素D 缺乏会导致永久性的大脑发育异常,如神经生长因子(NGF)表达减少、侧脑室增大、神经结构或神经递质相关基因(如MAP2, NF-L,GABA-Aa4)表达降低、脑组织氨酰胺水平普遍降低、去甲肾上腺素和丝氨酸水平升高、多巴胺水平升高、5-HT 水平下降等。
维生素D——神经保护剂
而维生素 D的存在,可以改善由于脑部炎症和神经毒性引起的脑损伤,促进NGF表达,延缓神经元细胞死亡。因此,维生素D 可以作为一种神经保护剂保护大脑皮层神经元避免兴奋性毒性。
自闭症儿童肠道患病率更高
自闭症儿童存在免疫系统功能紊乱,胃肠道紊乱患病率高于正常发育儿童。一项超过14,000 例自闭症患者的多中心研究显示,自闭症患者炎症性肠道疾病患病率为0.83%,而全院患者患病率为0.54%;自闭症患者其他胃肠道紊乱疾病患病率为11.74%,而全院患者患病率为4.5%,表明自闭症肠道患病率更高。
Wang L 等研究发现,在自闭症患者和正常人群中发现鲍氏梭状芽孢杆菌存在明显差异。自闭症患者肠道中的脱硫菌属比正常人群明显增多,且普通拟杆菌属含量丰富,自闭症患者与对照组正常人群肠道中的放线菌及变形菌属含量也有差异。
还有研究观察到自闭症患者肠道中有更高水平的萨特菌和瘤胃球菌属。国外通过自闭症小鼠模型肠道菌群宏基因组的研究发现,其脆弱拟杆菌属、梭菌属比例较对照组明显异常,口服脆弱拟杆菌可改善自闭症样行为症状。
维生素D通过影响Th17/Treg细胞平衡改善菌群紊乱
维生素D 可调节Th 细胞以及Treg 细胞功能,可抑制Th17 细胞,并促进Treg 细胞的增殖。Th17/Treg细胞平衡可能是维持正常的机体整体免疫功能和肠道免疫屏障功能中关键的因素。
维生素D 通过影响Th17/Treg细胞平衡调节自闭症肠道的菌群紊乱,进而通过脑肠轴作用改善神经系统的发育。
这些研究提示,自闭症存在肠道微生物生态失衡,肠道微生物失衡的改善很有可能作为自闭症治疗新的发展方向。
VD与肠道菌群相互影响,从而影响肠道疾病
结直肠癌
2009 年Volker Mai 团队研究了非裔美国人结直肠癌高于白种美国人,研究发现非裔美国人饮食中的环杂胺明显增高,维生素D 摄入量明显减少,两组人群的粪便微生物群组成也存在差异,推测环杂胺、维生素D 与肠道菌群的组成有相互影响,从而影响肠道环境促进结直肠癌的发生。
克罗恩病
维生素D 缺乏与克罗恩病(Crohn’s disease,CD)的发病有关,研究表明补充维生素D3 会改变CD 患者肠道细菌组成,参与者口服维生素D3,从第1 天至第3天每天服用20000 IU,然后每隔一天服用一次,共4 周,CD 患者口服一周后,Alistipes 菌、Barnesiella 菌、紫单胞菌科(Porphyromonadaceae)、Roseburia 菌、Anaerotruncus 菌、Subdoligranulum 菌和Ruminococaceae(均为厚壁菌门)的丰度显著增加。
炎症性肠病
1,25-OH2-D3 治疗还可在炎症性肠病中改变肠道菌群的组成,从而对小鼠有保护作用。
在肠道性疾病中肠道细菌组成多发生改变,补充维生素D 则可调节已经发生改变的肠道菌群组成。通过补充维生素D可以改变肠道内不同菌种的含量,调节肠道菌群的组成,增加双歧杆菌,拟杆菌,降低大肠杆菌和肠球菌的含量和比例。
肠炎
此外,益生菌治疗沙门氏菌肠炎的研究显示益生菌在维生素D 受体(VDR)缺陷小鼠中没有显示出保护作用,而在野生型小鼠中可抑制沙门氏菌诱导的炎症和损伤。
VDR基因消融降低肠道中DEFA5和MMP7表达,肠道通透性增加,肠道内环境紊乱,维生素D参与ß-防御素-2的表达,通过ß-防御素-2的表达与肠道菌群相互作用,改善肠道环境以及影响肠道炎症,并且存在剂量关系。溃疡性结肠炎急性期用维生素D能够缓解急性期症状,改善肠道粘膜和肠道菌群。此外,推测益生菌对个体起效可能依赖于VDR 基因。
以上,我们看到在各种肠道疾病的条件下,补充维生素D在一定程度上能改善肠道菌群。那么在缺乏维生素D的健康个体中,补充维生素D对肠道菌群是否有益?
近日,一项研究对80位健康维生素D缺乏的女性进行补充维生素D的治疗。
该研究主要是解决两个问题。
1. 补充维生素D对受试者的肠道菌群的影响
补充维生素D可显着增加肠道微生物多样性。具体而言,拟杆菌/厚壁菌的比例增加,益生菌类Akkermansia和双歧杆菌的丰度增加。拟杆菌属和普氏杆菌属显著变化,表明补充后肠型发生了变化。
2. 评估受试者菌群是否与他们的无反应状态有关。
注:无反应状态指一部分人群口服高剂量的维生素D也无效。
已有研究表明,Bacteroides acidifaciens可以预防肥胖和提高胰岛素敏感性,也是大肠中促进IgA抗体产生的主要共生菌之一。在该研究中,无反应者中较低的Bacteroides acidifaciens以及补充维生素D后的额外消耗表明,这种细菌可能与补充维生素D的反应有关。
因此,研究人员有这样一个设想,维生素D的补充促进有益菌生长,以维持免疫微生物的体内平衡。当然,需要开展更大队列的实验研究,以充分代表有反应者/无反应者,来证实该研究的发现。
6.1 鱼 类
鲑鱼
鲑鱼是一种受欢迎的脂肪鱼,也是维生素D的重要来源。
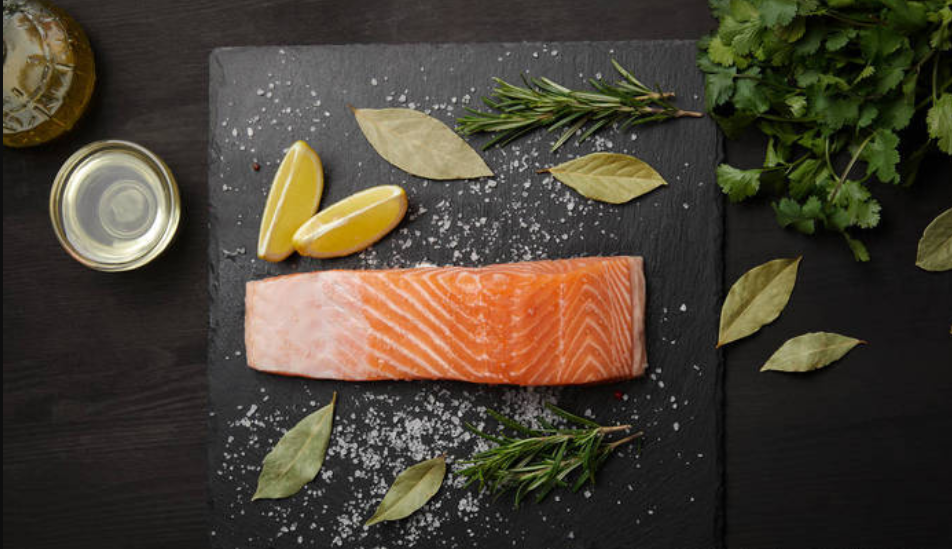
根据USDA食物成分数据库显示,一份3.5盎司(100克)大西洋鲑鱼每份含526 IU维生素D。
一些研究发现野生鲑鱼的含量更高,每份高达1300 IU。而鲑鱼养殖平均含量为250 IU。
鲱鱼
鲱鱼也是维生素D的最佳来源之一。每100克新鲜大西洋鲱鱼可提供216 IU,如果不是新鲜的鱼,腌鲱鱼也是维生素D的良好来源,每100克提供112 IU。
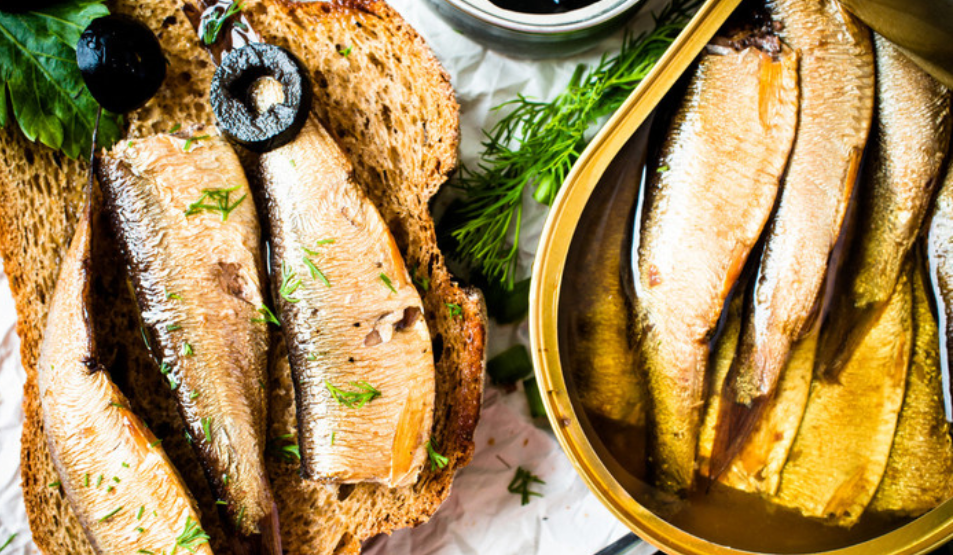
其他鱼类包括沙丁鱼,大比目鱼和鲭鱼等,都是维生素D的良好来源。
金枪鱼罐头
每包100克可含多达268 IU的维生素D,然而金枪鱼罐头中一般含有甲基汞(甲基汞是许多鱼类中发现的一种毒素)。可以选择淡金枪鱼(通常比白金枪鱼更好),每周不超过170克,可以防止甲基汞过多。
鱼肝油
鱼肝油每匙(4.9毫升)含维生素D约448 IU。同时也富含维生素A,omega-3脂肪酸等,但是不要服用过量。
6.2 蛋 黄
不吃鱼的人应该知道,海鲜不是维生素D的唯一来源。全蛋是另一种良好的来源,也是一种营养丰富的食品。
鸡蛋中的蛋白质大多在蛋清中,而脂肪、维生素和矿物质主要在蛋黄中。一颗标准的蛋黄含有37 IU的维生素D。
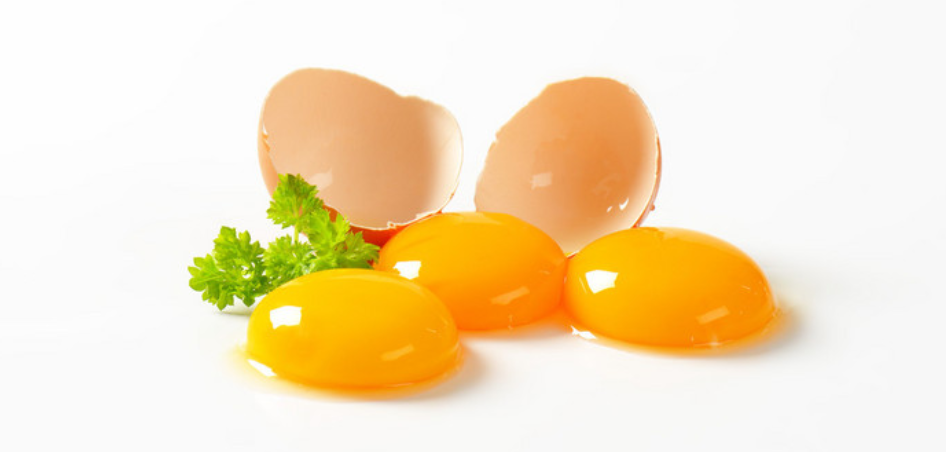
蛋黄中的维生素D含量取决于阳光照射和鸡饲料中维生素D的含量。当使用相同的饲料时,在阳光下漫游的牧场饲养的鸡所产卵的水平要高3-4倍。
从饲养的鸡中选择鸡蛋,或者从市场上购买富含维生素D的鸡蛋,可以满足日常需求。
6.3 蘑 菇
蘑菇是维生素D的唯一良好植物来源。蘑菇有点像人类,蘑菇在暴露于紫外线时也可以合成维生素D。不同的是,蘑菇产生维生素D2,而动物产生维生素D3。
某些野生蘑菇每100克包装含维生素D高达2300 IU。总的来说,只有野生蘑菇或经紫外线照射的蘑菇才是维生素D的良好来源。
6.4 强化食品
注:强化食品指向食品中添加一定量的食品营养强化剂,以提高其营养价值。
牛奶
有些牛奶中富含维生素D。每杯牛奶(237毫升)通常含有115-130 IU。
豆浆
通常会含维生素D以及牛奶中常见的其他维生素和矿物质。一杯(237毫升)通常含有107-117 IU的维生素D。
橙汁
一杯(237毫升)强化橙汁,包括高达100 IU的维生素D,当作早餐开启一天的活力。
燕麦片
半杯(78克)可提供维生素D量为54–136 IU。
注意以上食物中维生素D计算是强化食品中的含量。
最后,要提醒大家的是,“过犹不及”。维生素D虽然好,但不能补充过量。一旦维生素D过量,就会对身体带来伤害。
大剂量的维生素D服用一开始没有症状,但过几个月或几年就开始显现了,严重的情况下甚至可能导致肾脏衰竭和动脉钙化。
每天摄入1000-4000IU(25-100微克)的维生素D应该足以确保大多数人的最佳血液水平。
附 录 : 特殊人群维生素D补充剂量
维生素D缺乏引起的骨软化需要起始每日使用3000-40000IU的维生素D,随后使用每日400IU的维持剂量。
肠道吸收不良或肝脏疾病引起的维生素D缺乏通常需要每日使用40000IU(成人)治疗,每日10000-25000IU(儿童)。
甲状旁腺功能减退引起的低钙血症需要使用每日最多100000IU维生素D
——参考自:《DK家庭用药指南》
相关阅读:
参考文献:
Sizar O, Khare S, Goyal A, et al. Vitamin D Deficiency. [Updated 2020 Jul 21]. In: StatPearls [Internet]. Treasure Island (FL): StatPearls Publishing; 2020 Jan
Nair R, Maseeh A. Vitamin D: The “sunshine” vitamin. J Pharmacol Pharmacother. 2012 Apr;3(2):118-26.
Holick MF. Vitamin D: important for prevention of osteoporosis, cardiovascular heart disease, type 1 diabetes, autoimmune diseases, and some cancers. South Med J. 2005 Oct;98(10):1024-7.
Czernichow S, Fan T, Nocea G, Sen SS. Calcium and vitamin D intake by postmenopausal women with osteoporosis in France. Curr Med Res Opin. 2010 Jul;26(7):1667-74. [PubMed] 4.
Naeem Z. Vitamin d deficiency- an ignored epidemic. Int J Health Sci (Qassim). 2010 Jan;4(1):V-VI.
Singh Parul,Rawat Arun,Alwakeel Mariam et al. The potential role of vitamin D supplementation as a gut microbiota modifier in healthy individuals.[J] .Sci Rep, 2020, 10: 21641.
Thomas MK, Lloyd-Jones DM, Thadhani RI, Shaw AC, Deraska DJ, Kitch BT, Vamvakas EC, Dick IM, Prince RL, Finkelstein JS. Hypovitaminosis D in medical inpatients. N Engl J Med. 1998 Mar 19;338(12):777-83.
Gröber U, Kisters K. Influence of drugs on vitamin D and calcium metabolism. Dermatoendocrinol. 2012 Apr 01;4(2):158-66.
Pereira-Santos M, Costa PR, Assis AM, Santos CA, Santos DB. Obesity and vitamin D deficiency: a systematic review and meta-analysis. Obes Rev. 2015 Apr;16(4):341-9.
Elliott ME, Binkley NC, Carnes M, Zimmerman DR, Petersen K, Knapp K, Behlke JM, Ahmann N, Kieser MA. Fracture risks for women in long-term care: high prevalence of calcaneal osteoporosis and hypovitaminosis D. Pharmacotherapy. 2003 Jun;23(6):702-10.
Kennel KA, Drake MT, Hurley DL. Vitamin D deficiency in adults: when to test and how to treat. Mayo Clin Proc. 2010 Aug;85(8):752-7
Palacios C, Gonzalez L. Is vitamin D deficiency a major global public health problem? J Steroid Biochem Mol Biol. 2014 Oct;144 Pt A:138-45.
Zadka K, Pałkowska-Goździk E, Rosołowska-Huszcz D. The State of Knowledge about Nutrition Sources of Vitamin D, Its Role in the Human Body, and Necessity of Supplementation among Parents in Central Poland. Int J Environ Res Public Health. 2018;15(7):1489. Published 2018 Jul 14.
Sordillo JE, Zhou Y, McGeachie MJ, et al. Factors influencing the infant gut microbiome at age 3-6 months: Findings from the ethnically diverse Vitamin D Antenatal Asthma Reduction Trial (VDAART) [J]. J Allergy Clin Immunol, 2017, 139(2):482-491.
Luthold RV, Fernandes GR, Franco-de-Moraes AC, et al. Gut microbiota interactions with the immunomodulatory role of vitamin D in normal individuals[J]. Metabolism, 2017,69:76-86.
Mai V , Mccrary Q M , Sinha R , et al. Associations between dietary habits and body mass index with gut microbiota composition and fecal water genotoxicity: an observational study in African American and Caucasian American volunteers[J]. Nutrition Journal, 2009, 8(1):49.
White JH. Vitamin D deficiency and the pathogenesis of Crohn’s disease[J]. Steroid Biochem Mol Biol, 2018,175:23-28.
Schäffler H, Herlemann DP, Klinitzke P, et al. Vitamin D administration leads to a shift of the intestinal bacterial composition in Crohn’s Disease patients, but not in healthy controls[J]. Journal of Digestive Diseases, 2018, 19(4): 225- 234.
Ooi JH, Li Y, Rogers CJ, et al. Vitamin D regulates the gut microbiome and protects mice from dextran sodium sulfate-induced colitis[J]. J Nutr, 2013,143(10):1679-1686.
Shang M, Sun J. Vitamin D/VDR, Probiotics, and Gastrointestinal Diseases[J]. Curr Med Chem, 2017,24(9):876-887.
李子傲. 母乳喂养对肠道菌群的影响[J]. 营养与健康,2016, 10( 8) : 97-99.
汪英,袁莉,李广利,等. 肥胖与血清维生素D 水平的关系研究[J]. 中华内分泌代谢杂志,2011,27 ( 7) :589-590.
祝海波,周苗苗,王海,张晓宇.婴儿早期维生素D补充水平对生长发育和肠道菌群的影响[J].中国食物与营养,2018,24(12):87-89.
李苹,昌雪莲,尚煜,刘雅静,陈晓宇,梁爱民,齐可民.婴儿早期维生素D补充对生长发育及肠道菌群的影响[J].公共卫生与预防医学,2018,29(01):12-16.
杜琳. 维生素D介导的Th17/Treg细胞稳态调节对孤独症大鼠肠道菌群失调作用的研究[D].吉林大学,2019.

谷禾健康
“ 在人类适应中整合宿主-微生物群的相互作用可以提供新的方法来提高我们对人类健康和进化的理解。”
面对快速的环境变化,生物如何适应新环境是进化生物学中的一个核心问题。
刚刚,来自德国马克斯·普朗克研究所研究人员在science发表了最新文章:
回顾了人类适应新环境的例子,这些例子表明宿主基因和微生物群之间的相互作用。提出宿主机制可以在本地适应过程中替代或补充有益的微生物群功能。寻找微生物群与人类遗传适应性有关的其他例子。
当人类在基因上适应新环境时,他们的微生物群也可能参与这个过程。微生物可以比宿主进化得更快,这使它们能够对环境变化做出快速反应。微生物群还过滤宿主的环境,从而改变宿主的选择性压力。
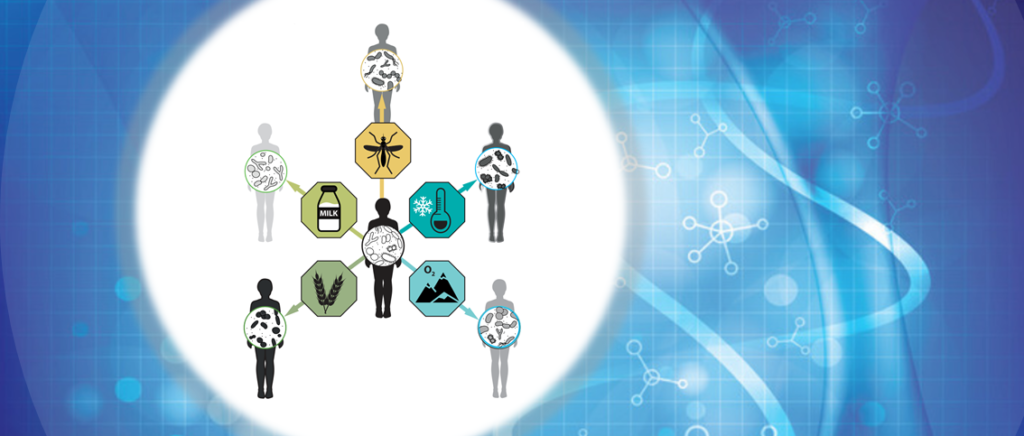
图1 人类及其微生物的局部适应
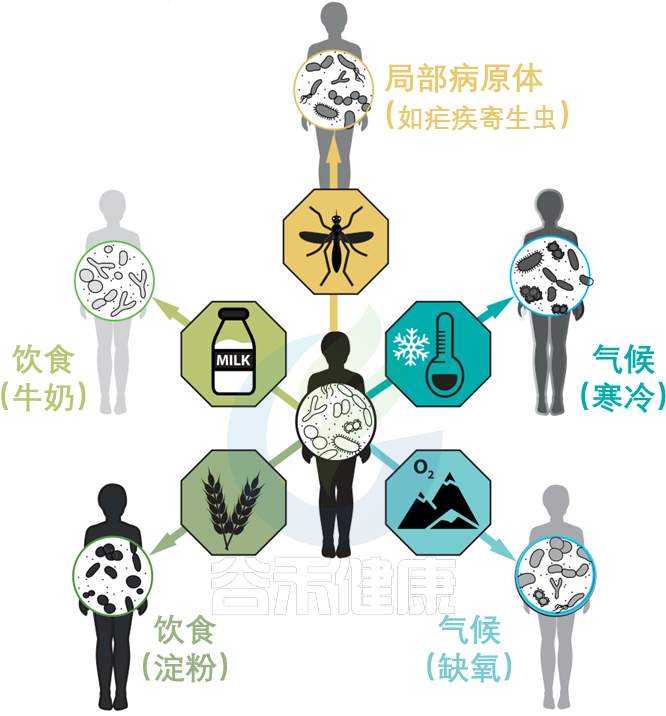
举例说明适应性宿主等位基因和适应性微生物群功能之间的相互作用。
选择压力的差异,包括饮食、气候和病原体暴露,导致了人类群体在性状上的差异,与消化、生理和免疫相关。这些差异是由跨多代发生的局部遗传适应造成的,与宿主一生中免疫系统的适应或生理适应是有区别的。
在许多情况下,主要的遗传变异体被确定为如下:
乳糖消化所需的乳糖酶:(由基因区域LCT编码)突变和截短
缺氧诱导因子2α:(由PAS1编码)在高原适应中产生作用
β-珠蛋白基因单倍型或镰状细胞性状:(由血红蛋白编码)在疟疾抗性中产生作用
此外,人类微生物群的组成和功能变化已被广泛描述。Amato等人最近回顾了可能影响人类本地适应性的微生物群的有益功能,例如微生物群增强营养和预防传染病。然而,在人类局部适应过程中,宿主适应性等位基因和适应性微生物群功能之间的特定相互作用仍有待研究。
接下来的两小节,作者详细研究了LCT–双歧杆菌和AMY1–瘤胃球菌之间的相互作用。在这些例子中,适应性宿主等位基因和适应性微生物功能是相联系的。
婴儿的主要能量来源于乳糖。在上消化道(GIT,下同),宿主酶乳糖酶将乳糖分解成葡萄糖和半乳糖。饮食中没有牛奶,乳糖酶的生产就会停止。乳糖酶非持续性LNP(乳糖不耐受)是祖先的条件。
注:由于乳糖酶活性的不同,人群中存在三种基因型,即纯合乳糖酶持续性(LP)、纯合乳糖酶非持续性(LNP)和杂合子(heterozygotes)。LNP是人群中最常见的表型。因乳糖酶的相对或绝对缺乏而导致的以腹泻为主的相关消化道症状的现象称之为乳糖不耐受。LNP是原发性乳糖不耐受的生理基础。
不同大陆的动物驯化(2500年到10000年前)和对非人类牛奶的反复消费导致了强烈的选择压力,使乳糖酶的生产持续到成年,即乳糖酶持久性LP(乳糖耐受)。LP是突变,在有长期放牧和挤奶历史的人群中常见。
宿主和微生物共争乳糖
许多肠道微生物群中常见的微生物可以使用β-半乳糖苷酶来裂解乳糖,然后发酵,乳糖可能被乳酸菌隔离。不管如何加工,微生物利用乳糖的副产物给宿主产生的能量更少。这意味着宿主和微生物在争夺乳糖,宿主有强烈的动机去战胜微生物。
乳糖耐受——宿主赢
乳糖耐受宿主胜过微生物,因为乳糖酶在微生物生物量较低的上层消化道中具有活性。
乳糖不耐受——微生物赢
相比之下,乳糖不耐受宿主主要在较低的消化道中获取微生物乳糖代谢的低能量密度产物。
因此,未消化的乳糖进入结肠可以被认为是一种需要微生物酶来处理的纤维形式。
就像结肠中的纤维降解一样,来自发酵的微生物,和它们的发酵产物[短链脂肪酸(SCFAs)]组成,虽然微生物群吸收了乳糖的一部分能量,但乳糖不耐受宿主的另一种选择是完全失去能量来源。
LCT位点的相同变异与肠道微生物群中双歧杆菌的相对丰度有关。
这种关联是迄今为止微生物组全基因组关联研究最一致的信号,该关联取决于牛奶消费量。
乳糖耐受基因型和双歧杆菌相对丰度之间的反比关系支持了哺乳动物乳糖酶和细菌β-半乳糖苷酶直接竞争乳糖的观点。
双歧杆菌是重要的乳糖降解菌,可能在产奶动物驯化后和选择乳糖耐受等位基因前帮助成年宿主从牛奶中提取能量。在畜牧业兴起后,乳糖代谢细菌可能在缺乏乳糖耐受等位基因的情况下对宿主的适应性产生积极影响。后来,有益的宿主等位基因出现并取代了微生物群的功能,在一些人群中变得几乎固定。
双歧杆菌(或功能过剩的微生物)产生的β-半乳糖苷酶也可能通过降低LCT基因型之间的适应度差异而减轻了对乳糖耐受等位基因的选择压力。
此外,如果微生物摄入乳糖能最大限度地减少与乳糖消化不良相关的疾病后果,并促进牛奶摄入,从而带来额外的益处,则微生物群可能会减轻能量权衡并维持人类群体中的乳糖酶多态性。
乳糖的例子表明,由微生物组和宿主基因组编码的活性可能特别容易受到宿主和微生物组之间竞争的影响。
与乳糖相反,人类饮食中的各种淀粉为宿主提供了一种机会,在较高的消化道中获得一种带有淀粉酶的淀粉,而在较低的消化道中为微生物群消化留下抗性淀粉。
事实上,淀粉有许多不同的形式,包括难以被宿主淀粉酶降解的结构,淀粉酶将淀粉分解成葡萄糖亚基。宿主和微生物群分配淀粉底物的程度可能取决于宿主基因型。
由AMY1基因编码的唾液淀粉酶在口腔中开始淀粉分解为葡萄糖的过程。唾液淀粉酶活性的个体差异与AMY1基因的拷贝数呈正相关,通常在2到15之间。
与AMY1 拷贝数含量低的个体相比,AMY1 拷贝数含量高的个体在食物到达较低的消化道及其微生物群之前,更彻底地消耗了给定饮食中对淀粉酶敏感的淀粉(图2,C和 D)。
图2 宿主基因型和微生物群之间联系的例子
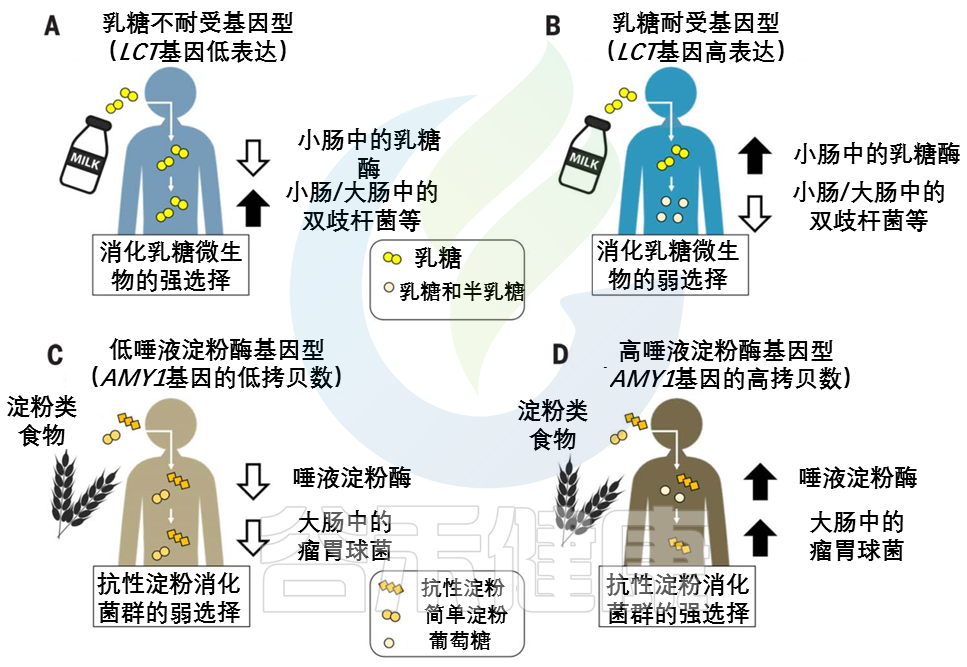
在(A) 乳糖不耐受宿主和(B) 乳糖耐受宿主中,乳糖酶基因型与双歧杆菌相对丰度呈负相关关系。
AMY1基因拷贝数(CN)和瘤胃球菌相对丰度之间的正相关性被描述为(C)低AMY1 拷贝数宿主和(D)高AMY1 拷贝数宿主。
不同类型的糖分以不同的形状和颜色显示。
AMY1 拷贝数为2是祖先的情况:AMY1 拷贝数在人类中的扩展可能是由从低淀粉饮食到高淀粉饮食的饮食转变所驱动的。
随着农业的发展,唾液淀粉酶水平的提高可能会促进高淀粉饮食人群的健康。与乳糖耐受的进化相似,宿主淀粉酶通过其比微生物发酵产物更大的能量产量而具有适应性优势。
具有AMY1高拷贝数的宿主还能从结肠微生物对抗性淀粉的强化降解中获益。
抗性淀粉发酵中的重要属——Ruminococcus
与AMY1低拷贝数个体的肠道微生物群相比,高AMY1拷贝数宿主的肠道微生物群富含瘤胃球菌属(Ruminococcus)。
在AMY1 低拷贝数宿主中,肠道细菌优先发酵淀粉酶敏感型淀粉,宿主不能使用这些淀粉,因为它们的唾液淀粉酶水平较低。
乳球菌,或功能冗余的微生物,可能通过放大AMY1高拷贝数和低拷贝数个体之间的相对适应度差异,增强了对AMY1 拷贝数扩增的选择压力,并可能增强了宿主基因-微生物的关联(图2,C和D)。因此,这种动态可能导致基于宿主基因型的微生物补充。
以上,作者提出宿主机制可以在本地适应过程中替代或补充有益的微生物群功能。接下来的章节,作者寻找微生物群与人类遗传适应性有关的其他例子,其中适应性的遗传基础得到了很好的描述。
有新的证据表明,微生物参与了其他几种人类遗传适应(图3),之前在这些适应中,微生物的作用没有得到充分认识。
图3 人类的局部适应性与微生物群有关
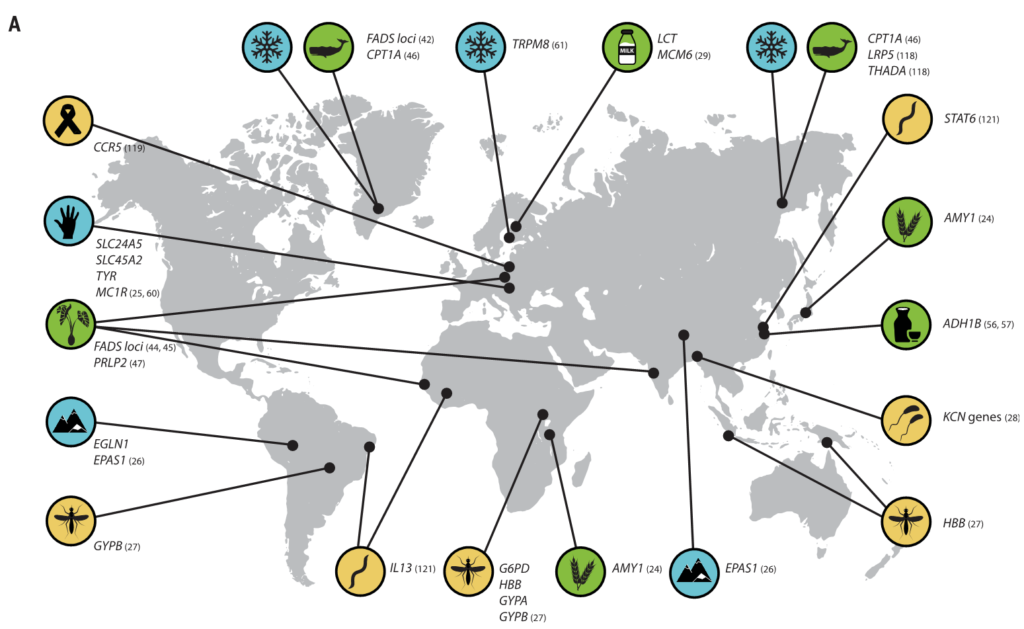
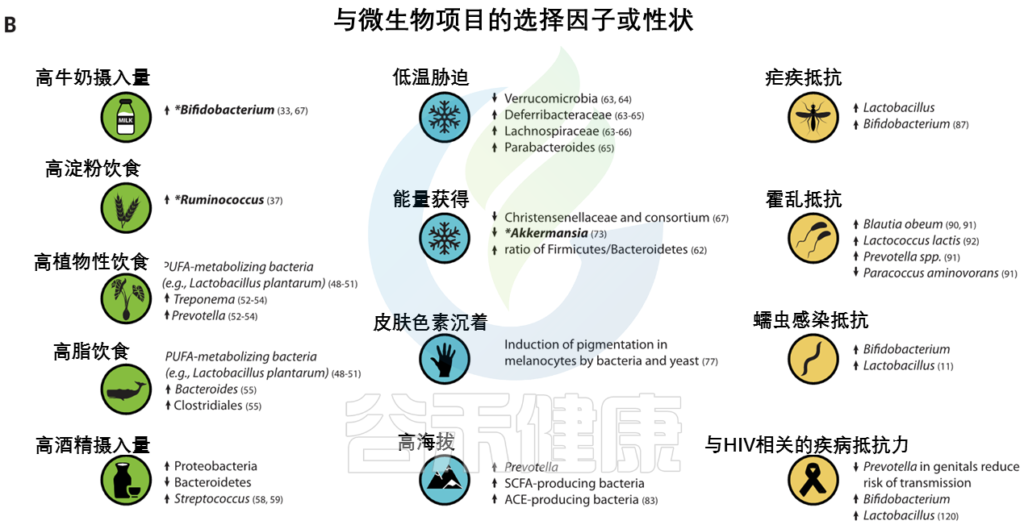
(A) 与适应性性状相关的人类基因位点的全球分布。这些符号对应于(B)中的选择因子和/或特征。
向上和向下的箭头分别表示微生物类群相对丰度与阳性或阴性相关的趋势。
微生物群的研究群体与宿主基因位点的研究群体不匹配.
星号和黑体字表示正向选择下与宿主基因位点相关的微生物类群: LCT和双歧杆菌,AMY1和Ruminococcus,PLD1和Akkermansia
乳糖和淀粉消耗可能是第一个已知的与饮食相关的基因-微生物相互作用的例子,可以进一步研究其在人类适应中的作用,但其他例子可能会出现。例如,长链多不饱和脂肪酸(LC-PUFAs)是关键的营养物质,可以直接从动物性饮食中获得,或者使用宿主衍生的酶从植物衍生的前体中合成。
脂肪酸代谢相关基因【包括脂肪酸去饱和酶(FADS)、肉碱棕榈酰转移酶1A (CPT1A) 和胰脂肪酶相关蛋白2 (PLRP2)】的正向选择证据与多种人群的饮食适应有关。
FADS基因区域的祖先等位基因与食用植物性食物的人群相关,衍生等位基因与当前和历史上偏爱高脂肪食物的人群相关。属于至少10个门的细菌似乎能合成长链多不饱和脂肪酸。
在人类肠道微生物中,植物乳杆菌和其他细菌已被证明能代谢植物来源的前体,并影响多不饱和脂肪酸来源的代谢物在体外和体内的生物利用度。分别通过植物性饮食或动物性饮食富集的人类肠道微生物 。
类似地,酒精脱氢酶1B (ADH1B)位点在人类中显示出正向选择的证据,并与脱脂摄入有关,人们认为这是伴随着农业的发展而产生的。
人和细菌的酶可以将乙醇转化为乙醛;肠道微生物群的变异与饮酒和相关疾病有关。
这些观察表明:
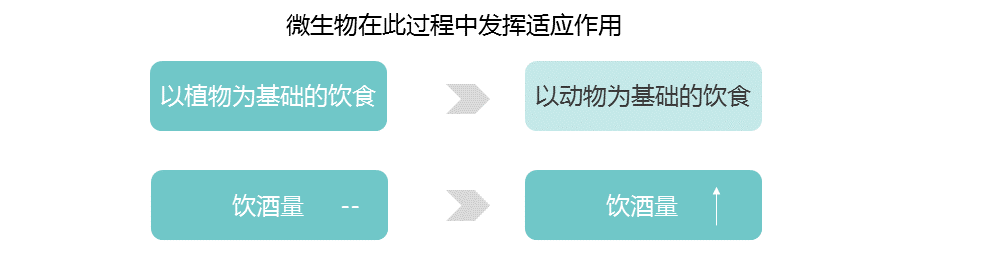
我们已经适应了自己所在地的气候。生活在高纬度地区的人面临冷胁迫,与温度感应(TRPM8)和能量收获(如FADS和CPT1A)相关的基因与气候相关的适应有关。
气候是参与常见代谢紊乱基因的重要选择压力
人类微生物群也因纬度而异,并可能通过提高从饮食中提取能量和随后储存脂肪的效率来促进与气候相关的适应。微生物群中的一些变异与环境温度和宿主体型有关。对小鼠的实验研究表明,仅环境温度的变化就能引起肠道菌群的变化。
低温
低温暴露宿主的微生物表现出更高的吸收能力和能量收获能力,以及棕色脂肪组织产生的热量增加。然而,微生物介导的产热和TRPM8多态性在人类中是否相关仍有待确定。
· Christensenellaceae
人类肠道中最紧密和高度可遗传的分类单元,细菌家族christensenellaceae,它与较低的体重指数(BMI) 和代谢紊乱有关。甲烷菌科、脱水杆菌科 和Tenericutes在多个人类群体中也表现出遗传性,并与Christensenellaceae共存。
最近的证据表明,这些菌群之间的代谢相互作用可能会影响宿主对代谢物的利用。
GWASs没有发现显著的宿主遗传变异。这表明,一些明显可遗传的分类群可能具有多基因性质,其中许多基因的影响很小。
· Akkermansia
Akkermansia是一种微生物降解菌,也与体重指数有关,在多项研究中显示为一个可遗传的分类群。Akkermansia的相对丰度与PLD1 中的宿主遗传变异有关,PLD1是之前与BMI相关的基因。PLD1显示了非洲人群中正向选择的证据,但选择剂尚不清楚。
太阳辐射
生活在低纬度地区的人群面临高水平的太阳辐射,与皮肤色素沉着相关的基因是人类本地适应的典型例子(图3)。
皮肤中的黑色素保护皮肤免受紫外线辐射,其抗菌特性被认为是皮肤色素沉着纬度梯度的替代假设。因此,人类黑素细胞中皮肤色素沉着的增加可以通过暴露于微生物产物如脂多糖来诱导。
Guéniche等人报道了乳酸菌对皮肤的保护作用,紫外线照射后的全身免疫反应。鉴于肠道微生物群在调节皮肤内环境稳定中的新兴作用,进一步的研究可能有助于确定色素沉着基因与皮肤和肠道微生物之间的潜在相互作用。
高海拔环境
高海拔环境也带来了许多生理挑战,包括缺氧应激,这也可能被微生物群改变。在高海拔环境中,已经鉴定出与氧呼吸和血液循环相关的多种适应性特征和基因,这些特征和基因通常涉及血压的调节(图3)。
最近,肠道微生物群被证明通过产生短链脂肪酸来调节血压,短链脂肪酸有可能在高海拔环境中帮助调节血压。
包括丁酸盐在内的短链脂肪酸的产生影响小鼠缺氧诱导因子的活性,这也是多个人类群体中参与高海拔适应的关键途径。作用于肾素-血管紧张素系统的细菌血管紧张素转换酶(ACEs)的产生也可能改变高海拔环境中的血压。细菌ACEs已被证明能在体外转化哺乳动物血管紧张素。
病原体被认为是人类适应性进化的主要驱动力之一(图3),微生物群与病原体防御和免疫之间的界面已被广泛研究。
人类本地适应的一个典型例子是疟疾抗性的遗传基础,由疟原虫属的几种寄生原生动物引起。皮肤和肠道微生物可能影响疟疾的不同阶段。
相同细胞因子相关基因的遗传变异,包括IL10、IL12、肿瘤坏死因子、干扰素α和干扰素γ,与疟疾严重程度和微生物群组成的变异有关。
Ippolito等人总结了微生物群在疟疾抗性中可能扮演的多重角色的几种假说:
1 皮肤细菌产生可改变蚊子媒介吸引力的挥发性化合物
2 由肠道微生物诱导的抗原表达,该抗原表达诱导针对疟原虫传播的保护性抗体
3 影响血液阶段疟原虫感染严重性的微生物群的差异
其他可能受到微生物群和宿主遗传变异组合影响的感染包括霍乱、艾滋病毒和蠕虫感染。
霍 乱
霍乱毒素针对几个带有显示选择信号的基因的离子通道。已经在人群中鉴定出与霍乱易感性和从霍乱中恢复相关的肠道微生物分类群。实验研究已经确定了提供定殖抗性和抑制霍乱弧菌毒性的细菌分类群。
鉴于在胃肠疾病中离子通道的表达和功能经常被改变,探索微生物群和离子通道基因之间的联系对于治疗或预防腹泻疾病可能是有价值的。
艾滋病毒和蠕虫感染
阴道微生物群在艾滋病毒的获得和传播中起作用,
肠道微生物群与蠕虫相互作用并改变疾病结果。
对研究充分的宿主适应性等位基因和新兴有益微生物群功能之间的相互作用的进一步研究可能会揭示以前未知的抗病机制。
这里提到的所有宿主基因-微生物例子(图3)仍处于研究的早期阶段。但是在每一种情况下,微生物群都有可能通过改变适应性景观来影响宿主的进化。这些微生物可能改变了宿主的环境,导致宿主表型选择压力的改变。
在未来关于适应性宿主基因型和适应性微生物群功能之间关系的研究中,GWASs、候选基因方法或使用基因敲除模型的移植实验可以帮助确定维持有益微生物群功能的宿主遗传机制,并测试微生物群的替代和补充是否是适应性的一般特征。
基因研究已经将越来越多的群体纳入考虑范围,微生物群的特征研究也是如此。但到目前为止,包括宿主遗传学和微生物群的研究,除了少数例外,主要是在西方人群中进行的。
需要将人类基因研究的范围扩大到更广泛的人群和地点,其中包括微生物组成分。这些类型的研究结果将测试当前发现的普遍性,并描述更多微生物介导的适应情况。
还可以进一步研究特定分类群的遗传力,以更好地表征潜在的遗传多态性。遗传性既适用于分类群,也适用于微生物功能,因此通过宏基因组学将与人类遗传变异相关的性状从分类群扩展到功能群,将有助于进一步阐明微生物群在人类适应中的作用。
在这里关注的是宿主(主要是人类)的进化,但是微生物也在快速进化以适应它们的宿主环境。在适应性进化的背景下,对宿主基因组和微生物群之间相互作用的更好理解将阐明人类和其他动物及其微生物群是如何适应不断变化的世界的。
参考文献:
Suzuki Taichi A,Ley Ruth E,The role of the microbiota in human genetic adaptation.[J] .Science, 2020, 370
Bayless Theodore M,Brown Elizabeth,Paige David M,Lactase Non-persistence and Lactose Intolerance.[J] .Curr Gastroenterol Rep, 2017, 19: 23.
S. Fan, M. E. B. Hansen, Y. Lo, S. A. Tishkoff, Going global by adapting local: A review of recent human adaptation. Science 354, 5 4–59 (2016). doi: 10.1126/science.aaf5098; pmid: 27846491
M. Fumagalli et al., Greenlandic Inuit show genetic signatures of diet and climate adaptation. Science 349, 1343–1347 (2015). doi: 10.1126/science.aab2319; pmid: 26383953
T. A. Suzuki, F. M. Martins, M. W. Nachman, Altitudinal variation of the gut microbiota in wild house mice. Mol. Ecol. 28, 2378–2390 (2019). doi: 10.1111/mec.14905; pmid: 30346069
谷禾健康
宏基因组中短序列的注释是理解测序微生物群落潜在功能的重要步骤之一。单纯利用局部匹配的注释容易混淆那些蛋白同源性且局部序列非常相似的序列,进而不能真实准确反映复杂蛋白质家族中多变的结构和功能域。

今天我们介绍一种新方法MetaGeneHunt,该方法可以识别特定的蛋白质结构域,并根据结构域的长度对hit-counts进行标准化。使用MetaGeneHunt对MG-RAST对公开获取的宏基因组进行分析,包括哺乳动物微生物群和Twin Gut肠道菌群研究,以评估短序列中含GH蛋白的频率和位于GH区域的匹配频率。
在对糖苷水解酶(GHs)的研究,发现在所有样本中4726,023条含有GH区域蛋白匹配的短读序列中,有58.3%的序列位于目标区域之外。接下来,在比较样本之前,将匹配到目标区域的hit-counts标准化,以说明对应的域长度。肠道和盲肠中的菌群显示出与不同微生物组合相匹配的GH谱特征。
相反,胃和结肠的菌群在结构和功能上显示出更多样性和多变性。在样本中,尽管有波动,但碳水化合物处理的潜在功能变化与群落组成的变化相关。这表示,在利用MG-RAST平台处理宏基因组测序序列时,MetaGeneHunt是一种能快速准确地识别短序列宏基因组中离散蛋白结构域的新方法。
在过去的几十年里,宏基因组DNA的高通量测序已经产生了大量的序列,这些序列的特征为我们了解微生物群落的结构和功能提供了许多认知。例如,截至2019年12月,MG-RAST托管了约40万个可公开访问的带注释的数据集。在数据处理过程中,不考虑目标区域(或蛋白质)的长度会导致两个主要的系统偏差。
首先,目标区域越长,他们的频率就越容易被高估。其次,如果数据处理涉及稀疏性,较短的、不太丰富的域,尽管重要,也可能被丢弃。为了解决这些问题,研究人员设计了MetaGeneHunt来精确注释从MG-RAST检索到的短序列宏基因组中的蛋白质结构域。MetaGeneHunt将MG-RAST提供的短序列局部比对与M5nr数据库中精确的基于PFam的蛋白质结构域识别相结合,以在公共可访问数据集中识别蛋白质结构域。
MetaGeneHunt简要说明:
MetaGeneHunt的设计基于MG-RAST平台注释的数据集的。在使用GeneHunt创建的M5nr数据库中,MetaGeneHunt使用了糖苷水解酶和辅助结构域(如CBMs)的精确的特定结构域注释(PFam)作为参考注释表(RAT)。
首先,MetaGeneHunt使用MG-RAST应用程序接口从MG-RAST(“330”和“650”文件)检索M5nr注释的宏基因组。接下来,使用来自RAT的注释命中的MD5id,在文件“650”中识别与潜在的GHs匹配的序列。
接下来,对于这些局部匹配,将精确对齐位置与RAT中特定于域的注释进行比较。如果查询中的>20AAs与特定的蛋白质结构域(考虑到RAT中的HMM-envelope位置)对齐,则该结构域注释被转移到查询中。
相反,如果查询的>20AAs匹配在目标区域之外(例如,在连接域、辅助域、信号肽中),则该注释被认为是否定的。用户可以随意修改重叠(overlapping)的阈值。接下来,从序列聚集文件( “330”文件)中检索每个识别出的命中的实际序列计数。最后,在后续的数据处理和标准化过程中,根据Pfam数据库中蛋白质结构域的大小,对每个蛋白质结构域的命中计数进行标准化。
方法验证:
文中使用的原始数据和预处理数据可在MG-RAST服务器上公开访问。在mgp20861项目中可获得对应于〜555百万个100 bp序列的小鼠微生物组数据。使用MG-RAST API 检索了哺乳动物微生物组数据(mgp116)和双肠肠道菌群研究(mgp10)其他数据集。哺乳动物微生物组研究糖苷水解酶(GHs)和相关酶的附加注释表是从Brian Muegge(直接对应)获得的。使用MG-RAST API检索了预处理的数据,包括从门到属水平的读物分类注释。数据分析和统计使用R统计语言。
1. 糖苷水解酶的识别,识别蛋白质结构域并考虑其长度产生了一个健壮的功能注释系统,对hit-count的标准化反应了目标区域的实际分布。

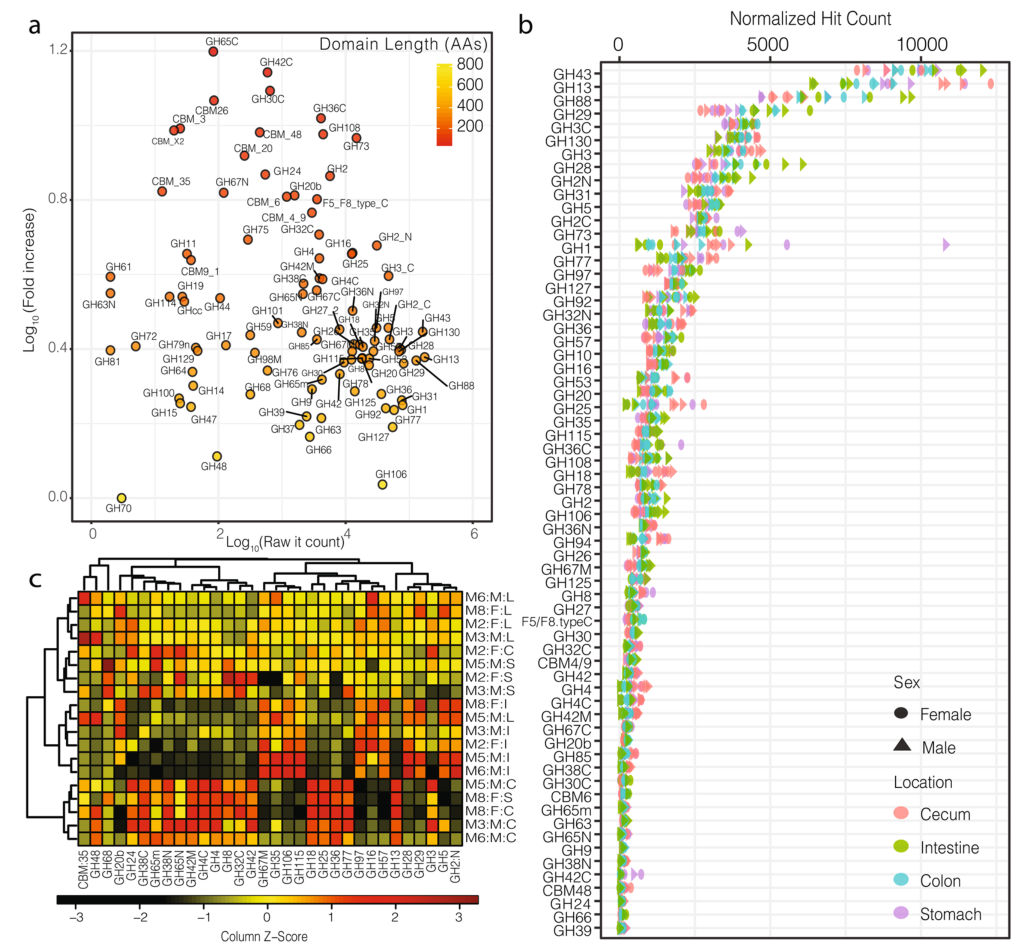
a).横轴为目标区域的原始hit-count,纵轴为标准化后的hit-count,图中的颜色阶梯表示目标区域的长度。这种标准化主要影响长度短的域(例如,GH78、GH25)、小的亚域(例如,GH31N、GH36C)和目标区域的附属域(例如,CMB5_12)。
b).小鼠胃肠道中目标区域的标准化后的hit-count(仅显示大于100的hit-count的区域),可见,标准化后的hit-count与结构域长度无关(附加文件中有对两者做相关分析,结果分别为P.pearson=0.38,P.spearman=0.33)
c).热图显示了小鼠胃肠道中最受样本来源影响的被稀疏标准化的GH区域的分布(two-way方差分析)。纵轴的注释列Mx:F/M:S/I/C/L分别表示小鼠(样本号):雌性/雄性:胃/肠/盲肠/结肠
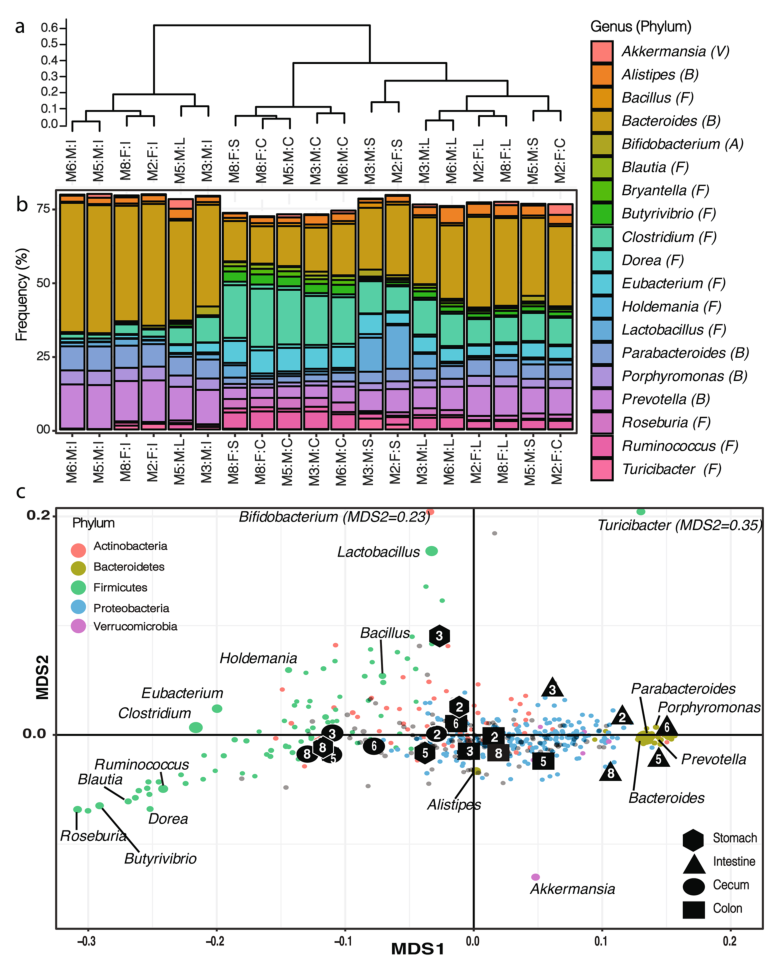
2. 小鼠肠道菌群的结构,与盲肠中的微生物群落相比,结肠与肠道中的微生物群落结构更相似,结肠和胃中的微生物群落有较高的相似性。

a).对受样本来源影响较大的样本根据属水平进行样本聚类(Bray-Curtis距离指数,complete linkage)。
b).样本间的微生物群落组成,只展示了相对丰度至少占群落中1%的属水平物种(V:疣微菌门,B:拟杆菌门,A:放线菌门,F:厚壁菌门)。
c).NMDS分析(2D stress=0.020),展示了在样本聚类中都存在的这些菌属,在b)中的主要类群用标签指示,不同门水平按颜色区分,点的大小反映该属在样本中的最大频率。
微生物组中的结构-功能关系,多样性仍然与潜在功能高度相关。胃和盲肠的群落在结构和功能上是最多样化的。其次,肠道中的群落组成和功能大多是保守的,而与保守的微生物群落相关的大肠则显示出可变功能潜力。
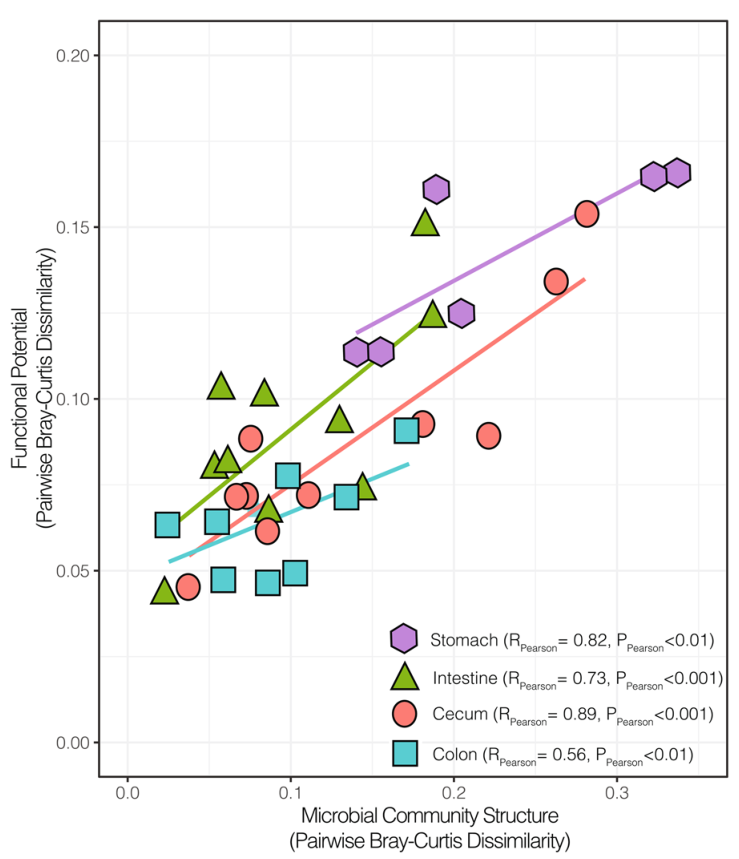

对同一位置的样本的微生物群落结构和功能差异进行成对比较(Bray-Curtis),线条为线性回归的结果。在胃,肠,盲肠和结肠中,属水平群落结构的变化与多糖解构功能的相关性分析结果表示除大肠外,其余的P.pearson的值都在0.001以下。胃和盲肠的群落在结构和功能上是最多样化的,尽管多样性仍然与功能潜力高度相关。其次,肠道中的群落组成和功能大多是保守的,而与保守的微生物群落相关的大肠则显示出可变的功能潜力。
MetaGeneHune提供了一种新的方法来识别短序列宏基因组中的GHs及其相关结构域。识别结构域而不是蛋白质是至关重要的,因为GH结构域与许多可变结构域相关。这种新方法基于GeneHunt注释方法,并对其进行补充,旨在分析MG-RAST中的短序列宏基因组。因此,它不需要大型计算机基础设施。
通过这种新方法对小鼠胃肠道菌群的GHs研究发现,在胃中,虽然富含碳水化合物处理的酶,但相对于胃肠道的其他部分,胃中没有特定酶可供选择;在肠道中,出现了更保守的菌群,最为富集的是拟杆菌门,它们的潜在功能主要在多糖处理上;来自结肠和胃的菌群虽然是距离最远的,但在结构和功能上却表现出高度的相似性。
在未来,利用GeneHunt和MetaGeneHunt相结合创建新的专用参考注释表将为研究宏基因组的潜在功能提供新的更有效的途径。
MetaGeneHunt和GH的RAT可在GitHub上公开访问。(https://github.com/renober/MetaGeneHunt)
参 考 文 献
Berlemont R, Winans N, Talamantes D, Dang H, Tsai HW.MetaGeneHunt for protein domain annotation in short-read metagenomes. Sci Rep.2020 May 7;10(1):7712. doi: 10.1038/s41598-020-63775-1. PMID: 32382098; PMCID:PMC7205989.
Muegge BD, et al. Diet drives convergence in gut microbiomefunctions across mammalian phylogeny and within humans. Science.2011;332:970–4. doi: 10.1126/science.1198719
Turnbaugh PJ, et al. A core gut microbiome in obese and leantwins. Nature. 2009;457:480–484. doi: 10.1038/nature07540.
Berlemont R, Martiny AC. Glycoside Hydrolases acrossEnvironmental Microbial Communities. PLOS Comput. Biol. 2016;12:e1005300. doi:10.1371/journal.pcbi.1005300.
Lozupone CA, Stombaugh JI, Gordon JI, Jansson JK, Knight R. Diversity,stability and resilience of the human gut microbiota. Nature. 2012;489:220–30.doi: 10.1038/nature11550.
Sharpton TJ. An introduction to the analysis of shotgunmetagenomic data. Front. Plant Sci. 2014;5:209. doi: 10.3389/fpls.2014.00209.
谷禾健康
2020年只剩最后一个月,全球范围内,疫情却未见消停。
新冠肺炎(COVID-19)不断威胁着全人类的健康,而对于癌症患者,更是雪上加霜。
来自意大利研究人员Angioletta等人带着这样的问题,对新冠和某些癌症的关系开始进行探索,回顾现有数据并且对乳腺癌(BC),肠道菌群(GM)和COVID-19之间的关系进行推测。
首先,他们发现新冠疫情期间的一项多中心研究指出,与没有癌症的COVID-19患者相比,感染COVID-19的癌症患者病情更严重,与没有患癌症的COVID-19患者相比,死亡率增加了近三倍。
现有的研究已经证实,病毒SARS-CoV-2利用ACE2受体进入,利用TMPRSS2进行S蛋白启动。
最近的一项Meta分析报告称,肺癌和结直肠癌患者更容易受到SARSCoV-2感染:支持生物信息学的数据显示,在这些癌症类型中,ACE2和TMPRSS2的mRNA表达水平均有所增加。
从上面的结论看来,也就是说癌症患者的生理环境恰好为新冠病毒的侵入提供了一个机会。然而,如果只是小样本量和仅包含七种类型的癌症,则解释结论需要更为谨慎。
所以到目前为止,可用的数据还不能完全确定是否有一种癌症类型更容易受到新冠肺炎病的影响,因为病例具有广泛的异质性,并且数据没有按性别进行分类和分析。
事实上,新的全球观察表明,与男性相比,新冠肺炎女性感染和死亡的风险较低。
这样的结论让研究人员更想探寻其中的缘由。
一般来说,基于不同的先天免疫、类固醇激素和与性染色体相关的因素等因素,女性不太容易受到新冠肺炎病的影响。
随机X染色体失活的影响是可能的解释之一,因为ACE2是由位于X染色体上的ACE2基因编码的。男性细胞总是表达单个ACE2等位基因,女性拥有一种更有效的ACE2受体,平均只存在于一半的细胞中。
虽然这种机制可能会限制感染SARS-CoV-2病毒的易感性,使女性具有相对的抵抗力,但这可能不足以解释女性对感染的不同易感性。
对此,Angioletta等人又找到了新的发现。
在最近对ACE2表达和活性的机制差异的综述中,作者报道了小鼠模型中ACE2活性在雄性肾脏中更大,这种性别差异是由雌二醇降低ACE2活性而引起的,而与性染色体补体无关。
性激素能够影响先天和适应性免疫反应:
雄激素具有抗炎作用;
雌激素既有促炎作用,也有抗炎作用。
正如这篇关于前列腺癌和SARS-CoV-2之间的生物相互作用和分子联系的综述所总结的那样,雌激素通过直接改变CD16表达来抑制促炎性IL-6的水平,并且可以影响自然杀伤细胞的水平。
注:自然杀伤细胞(natural killer cell,NK)是机体重要的免疫细胞,具有广谱的抗肿瘤细胞作用。
在武汉进行的一项横断面研究中,假设了雌激素的关键作用:丁及其同事分析了年龄小于60岁的女性患者的月经状况、与免疫和炎症相关的女性激素和细胞因子与严重程度和临床结局之间的相关性。雌二醇与感染的严重程度呈负相关,作者发现绝经是新冠肺炎病患者的独立危险因素。
可见雌激素的作用显得越来越重要,但雌激素具体是如何影响激素依赖性癌症的呢?
雌激素 & 肠道菌群
一项队列研究结果的分析强调了这个问题的相关性,该研究报告了来自新冠肺炎和癌症协会登记数据库的数据,乳腺癌 (21%)和前列腺癌(16%)这两种强烈依赖激素的癌症,是2020年3月至4月累积的1018例COVID-19病例中最常见的癌症类型。
该结果有点出乎意料。
我们再看该研究人群的年龄情况:中位年龄为66岁(IQR 57-76)【整体年龄偏大】,75岁及以上279例(30%),男性468例(50%)。
研究人员认为,这一发现支持了肠道菌群成分可能是解释这种联系的一个因素的假设。
原因:已有的数据表明,肠道菌群构成在物种和功能的流行方面存在性别差异,部分是由性激素驱动的:男性和绝经后女性的雌激素水平与肠道菌群丰度和多样性直接相关,而绝经前女性则没有相关性。
此外,肠道菌群能够调节血清雌激素水平,促进某些种类的菌群增殖;Plottel和Blaser将肠道细菌基因(其产物能够代谢雌激素)的集合定义为“estrobolome” (雌激素组)。
肝结合雌激素导致共轭雌激素和共轭雌激素代谢物分泌到胃肠道,在胃肠道中,它们被细菌来源的β-葡萄糖醛酸酶、葡糖苷酶和羟基类固醇脱氢酶转化为游离形式。如果雌激素组富含具有较高解偶联和羟基化酶活性的细菌,则将导致游离雌激素的相对水平更高。
在人类胃肠道中,最重要的β-葡萄糖醛酸酶编码基因称它为GUS基因;大约有112种新的GUS基因被鉴定出来,并被分为六类,分别在四个细菌门表达,即拟杆菌门、厚壁菌门、疣微菌门和变形菌门。其中,拟杆菌属的GUS酶的丰度和多样性最高。
肠道菌群 & 雌激素 & 乳腺癌
乳腺癌是女性中最常见的肿瘤,积累的数据表明发病率不断上升: 2018年,28个欧盟国家经年龄调整的乳腺癌年发病率估计为144.9/100000,死亡率为32.9/100000。
乳腺癌有许多危险因素,但一些研究分析了乳腺癌和胃肠道微生物对雌激素的依赖作用之间的复杂关系。
在2018年发表的一项研究中,与对照组相比,乳腺癌病例与IgA阳性和IgA阴性肠道菌群具有显著的雌激素独立相关性。
这些发现表明,乳腺癌风险可能通过IgA阴性菌群的雌激素肠肝循环和IgA阳性菌群的免疫介导途径受到影响。
事实上,当评估具有不同临床特征的乳腺癌患者中肠道菌群的组成时,双歧杆菌和Blautia的绝对数量以及柔嫩梭菌Faecalibacterium prausnitzii和Blautia的比例,会根据癌症的临床分期而有所不同。
与没有乳腺癌的个体相比,在乳腺癌患者中观察到厚壁菌门与拟杆菌门的比例增加。
如果肠道菌群的改变影响乳腺癌患者的雌激素活性,我们对菌群多样性和COVID-19了解多少?
肠道菌群 & COVID-19
最近一篇论文报道了肠道厚壁菌与COVID-19严重程度之间的联系:
与新冠肺炎严重程度呈负相关的主要细菌种类有:Alistipes onderdonkii 和F. prausnitzii
拟杆菌通过阻止宿主进入ACE2而表现出抵抗SARS-CoV-2感染的潜在保护作用
虽然说这项探索性研究的样本量不大(15名新冠肺炎病患者、6名社区获得性肺炎受试者和15名健康个体的粪便样本),但这些结果表明,个体的肠道微生物群可能会影响其对SARS-CoV-2感染的易感性和反应。
鉴于所有这些证据,两个问题可能会出现:
新冠肺炎和乳腺癌之间的关系是什么?
雌激素会影响它吗?
目前已有的信息中,并没有关于乳腺癌患者感染的真实发生率的信息,也没有关于乳腺癌的哪种亚型最相关的信息。
Angioletta等人认为还没有足够的数据来得出明确的结论,但可以提出假设,并尝试着提出研究方法。
乳腺癌 & 雌激素 & 肠道菌群
已知在乳腺癌患者中,雌激素主要由脂肪组织产生,并通过雄激素前体的芳构化产生;芳香酶抑制剂能有效抑制芳香酶活性,抑制血浆和组织中的雌激素水平,是绝经后妇女雌激素受体阳性乳腺癌的主要治疗方法之一。
注:芳香酶抑制剂可以阻止从脂肪组织中产生雌激素,但对卵巢产生的雌激素没有影响。它不能阻止卵巢产生雌激素,因此仅对绝经后女性有效。
肠道菌群成分影响激素调节的各个方面。此过程会上调类固醇激素和细胞因子的循环水平,而这些激素和细胞因子会增加乳腺癌的风险和进展。已经发现菌群失调与绝经后乳腺癌患者有关,与绝经前无关。但是芳香酶抑制剂和肠道菌群之间相互作用的性质尚未完全确定。
选择性雌激素受体调节剂可以调节肠道菌群,但迄今为止,关于芳香酶抑制剂和肠道菌群成分之间关系的数据仍然缺乏。
肠道菌群 & 雌激素 & 乳腺癌 & 新冠
当然还有许多混杂因素需要考虑,如BMI、年龄、抗生素摄入量;所有这些都可能改变肠道菌群,增加这个情况的复杂性。此外,体重指数和衰老是众所周知的新冠肺炎风险因素。
Angioletta等人推测雌激素组通过调节雌激素水平在改变对新冠肺炎的易感性中起作用。
建立与乳腺癌和新冠肺炎相关的肠道菌群改变之间的关系很重要,病例数量多,需要一种个性化的方法来识别有风险的患者。
为了评估乳腺癌和新冠肺炎易感性之间的联系,他们提出了三个策略:
1 收集和储存生物样本(粪便和血浆),通过横断面研究评估肠道菌群构成和雌激素活性之间的联系
2 建立一个大型数据库,收集正在进行的治疗中乳腺癌的特征,特别是接受内分泌治疗的雌激素受体阳性亚型,以及COVID-19的发病率
3 使用机器学习算法对数据库进行分析,以发现雌激素、乳腺癌和COVID-19之间的相关性
根据现有的数据,乳腺癌患者可能通过雌激素水平的增加来保护其免受新冠肺炎病的侵害,这一模式目前正在讨论中,并出现了许多问题,包括内分泌治疗是否会干扰雌激素受体,是否会使患者更容易受到新冠肺炎感染。
在不久的将来,研究乳腺癌、雌激素和新冠肺炎之间的联系,确定激素敏感型癌症患者对新冠肺炎的风险增加,并制定策略通过改变他们的肠道菌群来预防,可能是一种有效方式,当然也可能是挑战。
当前迫切需要更可靠的流行病学、临床前和临床数据来指导日常实践。
参考文献:
Lasagna Angioletta, Zuccaro Valentina, Ferraris Elisa et al. COVID-19 and breast cancer: may the microbiome be the issue? [J] .Future Oncol, 2020.
Hoffmann M, Kleine-Weber H, Schroeder S et al. SARS-CoV-2 cell entry depends on ACE2 and TMPRSS2 and is blocked by a clinically proven protease inhibitor. Cell 181(2), 271–280e278 (2020).
Dai M, Liu D, Liu M et al. Patients with cancer appear more vulnerable to SARS-COV-2: a multi-center study during the COVID-19 outbreak. Cancer Discov. 10(6), 783–791 2020
Wang B, Huang Y. Which type of cancer patients are more susceptible to the SARS-COX-2: evidence from a meta-analysis and bioinformatics analysis. Crit. Rev. Oncol. Hematol. 153, 103032 2020.
Conti P, Younes A. Coronavirus COV-19/SARS-CoV-2 affects women less than men: clinical response to viral infection. J. Biol. Regul. Homeost. Agents 34(2), 339–343 (2020).
Klein SL, Dhakal S, Ursin RL, Deshpande S, Sandberg K, Mauvais-Jarvis F. Biological sex impacts COVID-19 outcomes. PLoS Pathog.16(6), e1008570 (2020).
Chakravarty D, Nair SS, Hammouda N et al. Sex differences in SARS-CoV-2 infection rates and the potential link to prostate cancer. Commun. Biol. 3(1), 374 (2020).
Ding T, Zhang J, Wang T et al. Potential influence of menstrual status and sex hormones on female SARS-CoV-2 infection: a cross-sectional study from multicentre in Wuhan, China. Clin. Infect. Dis.Ciaa1022 doi:10.1093/cid/ciaa1022 (2020) (Epub ahead of print).
Kuderer NM, Choueiri TK, Shah DP et al. Clinical impact of COVID-19 on patients with cancer (CCC19): a cohort study. Lancet 395(10241), 1907–1918 (2020)
Zuo T, Zhang F, Lui GCY et al. Alterations in gut microbiota of patients with COVID-19 during time of hospitalization. Gastroenterology 159( 3), 944.e8–955.e8 (2020).
Augusto TV, Correia-da-Silva G, Rodrigues CMP, T eixeira N, Amaral C. Acquired resistance to aromatase inhibitors: where we stand.Endocr. Relat. Cancer 25(5), 283–301 (2018).
谷禾健康
朋友小杨是个科研人,每天按时吃饭,三餐规律,但在某次腹泻之后,小杨突然想起了医生的建议:做肠镜检查。
肠镜检查对于小杨而言是陌生而又新奇的,于是小杨开始飞速查阅相关文献。
用于检查肠道内部病变。对大肠息肉;大肠炎症性疾病如溃疡性结肠炎;慢性结肠炎;结肠癌等诊断有重要意义。
https://v.qq.com/x/page/r05303w8449.html谷禾肠镜过程介绍及肠镜检查后的注意事项动画_腾讯视频
谷禾肠镜过程介绍及肠镜检查后的注意事项动画_腾讯视频
查完后,小杨对肠镜检查有了大概的了解,需要先喝泻药排便清肠,才能进行正式的肠镜检查。与此同时,他脑海中又浮现出新的问题:
都说肠道中有大量的微生物,那么在大量排出粪便时会不会同时将肠道内的肠道菌群大量清除?
一次肠镜检查究竟对肠道菌群会有多大影响呢?
遗憾的是,目前文献较少提及此方面的内容。与我们进行沟通之后,小杨决定亲自做肠镜前后的肠道菌群检测,对比看看究竟会有什么变化。
肠镜检查前需要进行清肠准备,良好的准备可以为肠镜提供更好的视野,也会决定肠镜检查的效果。
目前常见的清肠方式主要采用复方聚乙二醇电解质方案,也就是泻药,主要成分为PEG4000,同时补充电解质。
好的清肠准备一般需要彻底排净粪便,直到排出无色清水便。
肠镜前准备会对肠道菌群产生怎样的变化呢?
是简单的等比例减少还是完全改变菌群构成?
满怀疑问的小杨开始了肠镜检查之旅。
检查当天,小杨开始服用聚乙二醇后,很快开始排便,状态为稀便,此时肠道尚未完全清空。等排空后,马上进行了肠镜检查。
做完肠镜检查,还没来得及思考太多,小杨就拿到了肠镜检查报告。
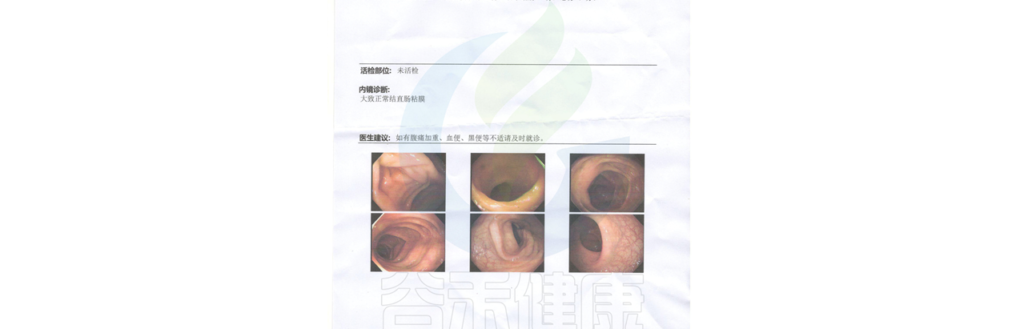
“ 肠镜结果显示正常 ”。
耳边传来了医生的话,小杨感到松了口气。
确保身体健康没问题了,小杨心中的疑惑却没有打消,是不是原本健康的肠道菌群会因此紊乱?
如果有不好的变化,我是不是应该做些什么帮助肠道菌群恢复?
小杨积极与我们进行沟通,希望我们给出相应的建议。我们基于文献及临床菌群干预经验给予饮食方面的小建议,这部分后面详述。
他按自己的理解结合我们的建议,采取了一些饮食干预措施。
当肠道菌群检测报告出来时,他很兴奋。
在整个过程包括前后,小杨完整地采集,总共完成了4次肠道菌群检测,分别为以下几个时间点:
· 肠镜检查前
· 检查当天服用聚乙二醇后首次排便
· 肠镜完成后首次排便
· 一周后
“怎么样?有变化吗?变化如何?”
…显然小杨很想知道结果。
为了便于理解,我们仔细帮他做了肠镜前一周和肠镜当天菌群的对比分析。
“一般人可没这待遇啊”,我们打趣道。
“来,看这些图表吧”…
肠镜当天菌群构成和丰度变化
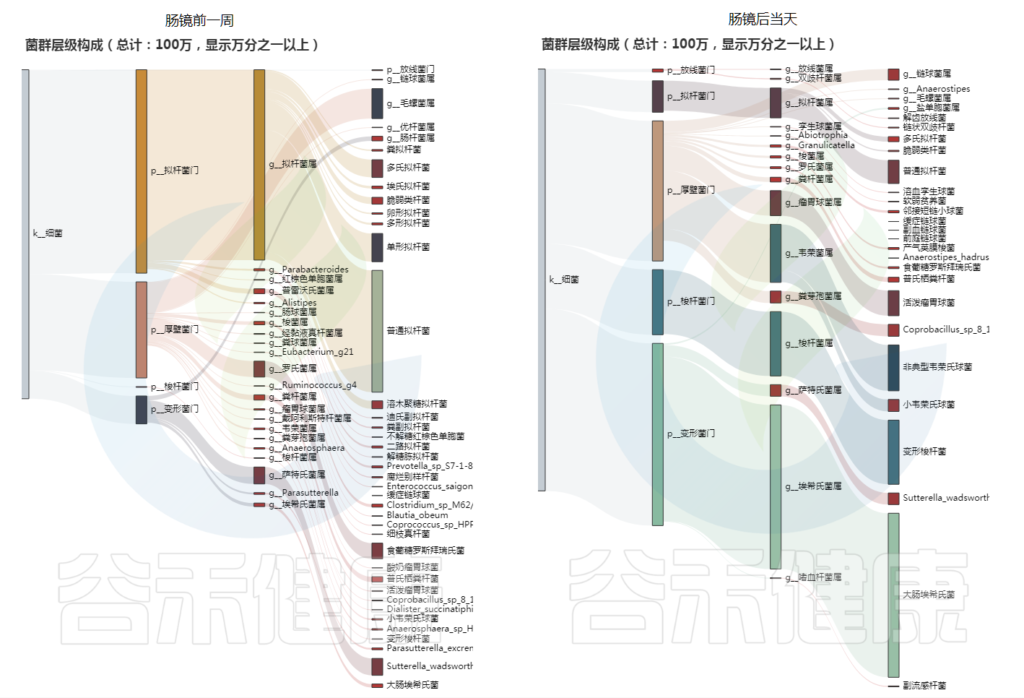
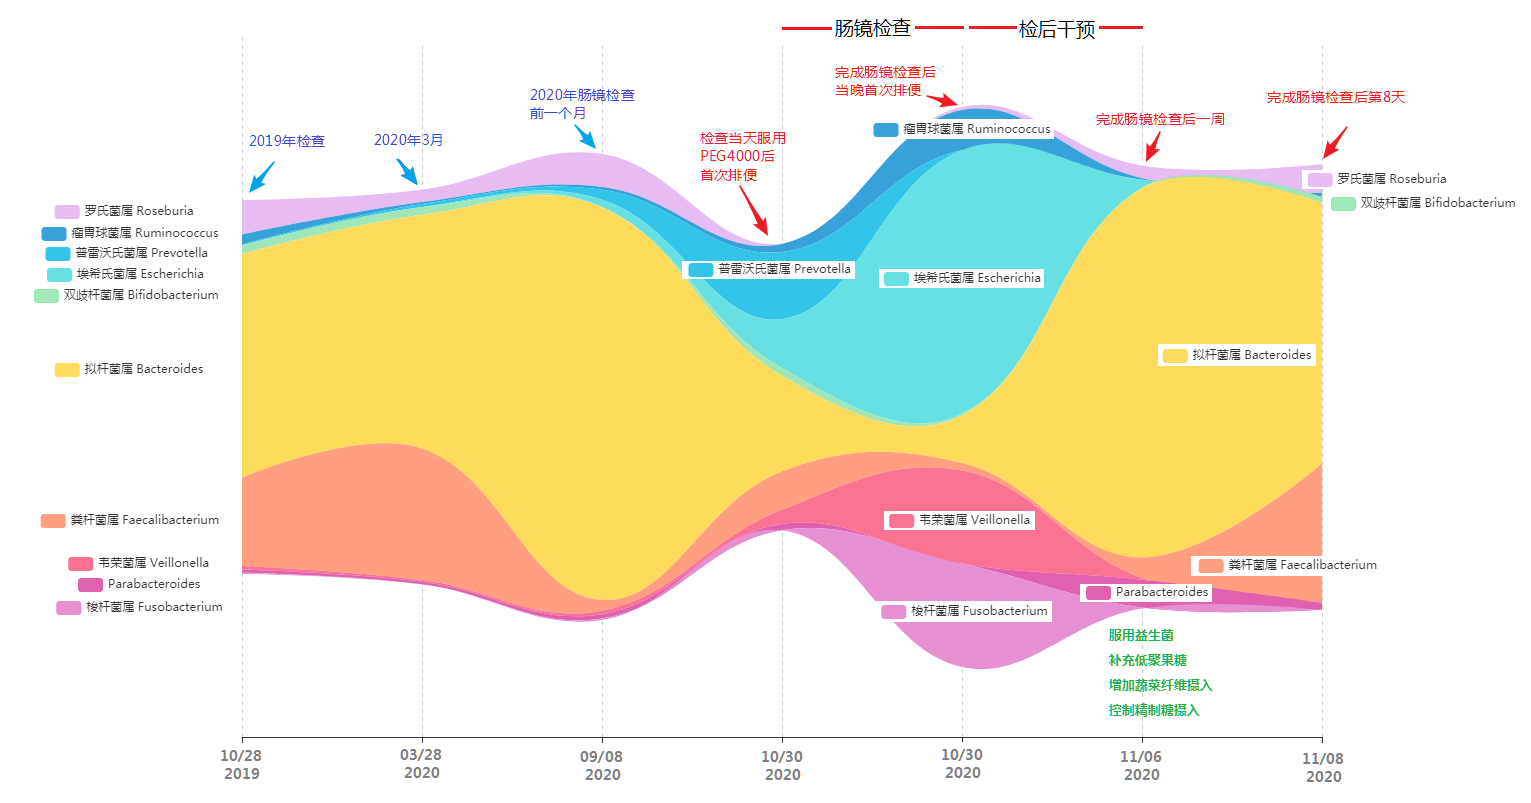
从图中可以看到,原本肠道内占极高比例的黄色拟杆菌属比例大幅压缩,罗氏菌属几乎消失不见。对应的普雷沃氏菌属以及埃希氏菌属(主要是大肠杆菌)比例快速增加,另外除了这些菌外还有大量的原占比很低的其他菌属出现(图中未展示)。
而更大的变化出现在完成肠镜检查后,他发现核心菌属变为埃希氏菌属、韦荣菌属、梭杆菌属和瘤胃球菌属。原来的三大核心菌属占比被压缩到了5%左右。
这样的结果虽然与预想的差不多,小杨不禁感慨道:
“ 看来做一次肠镜,菌群确实受到影响了 ”。
肠镜当天肠道菌群总体状况变化
从肠道菌群总体状况来看,也有非常明显的变化。
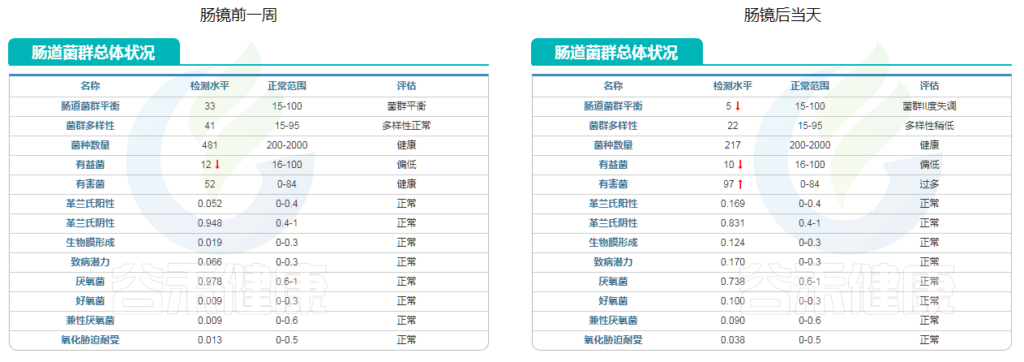
上图显示,肠道菌群平衡这项指标明显下降,菌群多样性也随之下降。紧接着的指标也很有意思,有益菌下降,有害菌大幅上升。说明肠镜检查当天服用聚乙二醇后大量排便扰乱了原先的菌群平衡。
这样的结果再一次印证了他当初的想法。
“ 菌群也许失衡了 ”,小杨开始低落了。
“做完肠镜当天,你吃了什么?”
“肠镜检查后当天及之后的一天,海带、蔬菜…” 小杨仔细回忆了一下,“哦,对了,发现粪便中存在较多未消化的蔬菜和纤维…”
“说明肠道对膳食纤维的消化利用能力尚未恢复”。
“参考肠镜检查后第一次排便的菌群结构” ,我们分析人员指着那张图说到,“其中埃希氏菌属以及韦荣菌属和梭杆菌属都没有代谢复杂碳水化合物的能力…”
“这不就对上了嘛…那之后呢?菌群怎么样了?” 小杨着急地问道。
“别担心,马上给你看一周后的检测结果”
肠镜后一周检测结果
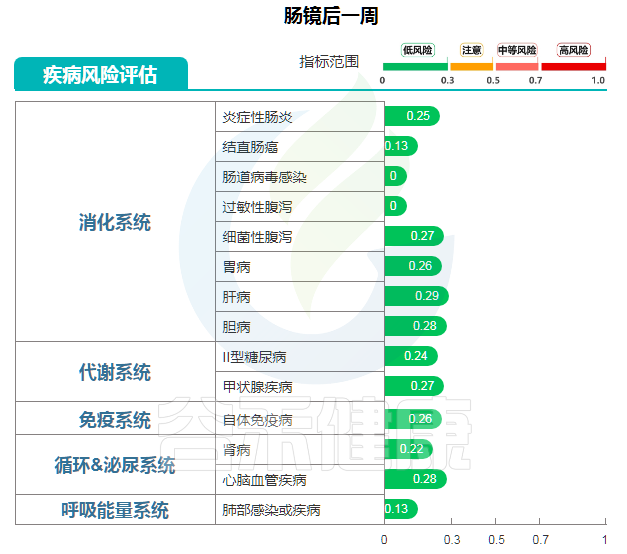
图中可以明显看到,肠镜后一周恢复健康,结直肠癌风险值为0.13,风险很低,也未见肠炎等消化道疾病风险。
“ 一切正常 ”
“肠镜检查我也很正常的,那就是说和肠镜检查结果一致咯…” 这回小杨神色又轻松了不少。
“当然”
“那我能不能知道,我的菌群到底恢复了没有?” 小杨果然没有忘记。
“行吧,既然你这么惦记,再给你整明白点儿…还记得2019年,你在我们这儿测的菌群结果吗?”
“怎么可能忘记,那可是我第一次尝试肠道菌群检测啊” 小杨好像有些得意。
“那这次要不要拿出来一起分析下?”
“可以啊,求之不得,就问你数据还在不?” 说着,小杨笑了起来。
“在啊,我们可是经过你同意的哦” …
“哪儿那么多废话,赶紧吧” 小杨知道这样的机会并不多。
“让我们把时间线再拉长到1年前…”
下图是基于小杨 2019-2020年不同时间点取样的肠道菌群结果变化图(“河流”图),从图中我们可以看到肠镜检查对肠道菌群产生的影响。
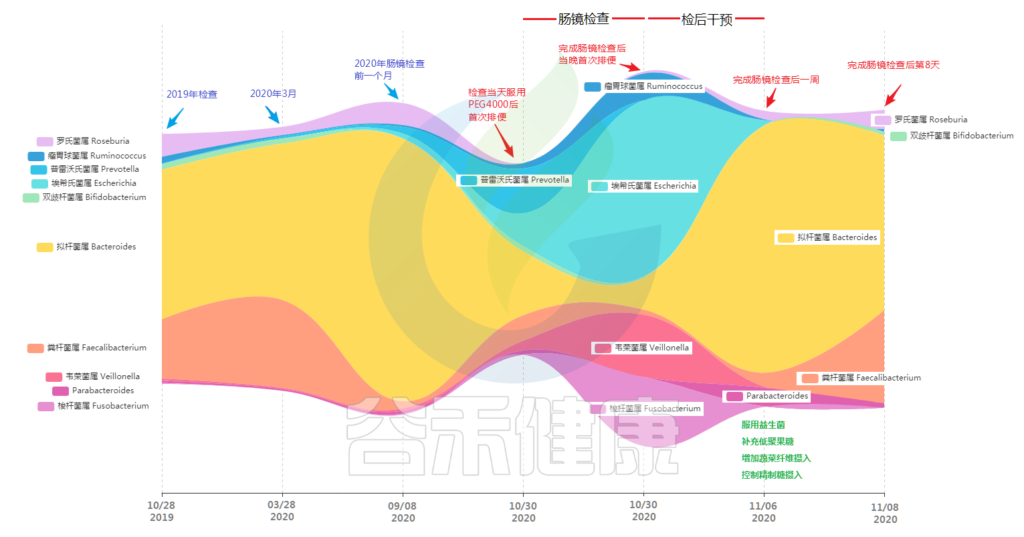
首先图表中的第1/2/3个时间点分别是小杨检查前一年、半年和一个多月前,可以看到其中肠道菌群核心构成的菌属为拟杆菌属。
此外粪杆菌属也就是柔嫩梭菌属Faecalibacterium也是主要菌属,但是期间比例变化较大,从半年前的近30%到了检查前不到5%,另外罗氏菌属也是核心菌属。以上这几个属占据了80%以上的菌群构成,而且存在相对稳定,其他菌属丰度含量较低,均在1%左右。
“我能不能问下,肠镜检查后占比大幅提高的几种菌,是一直存在于肠道内?还是经过清肠准备时引入的?” 小杨又开始好奇了。
“ 经过对之前几次数据的比对,确认这些菌在之前的几个时间点就存在于肠道内,但是比例不高 ”
“那么为什么聚乙二醇服用后在没有引入新的菌的情况下,会改变原来菌群的构成比例?” 小杨的大脑飞速运转着。
“ 这里可能的原因是肠道内不同空间位置的菌分布存在不同。”
“不好意思,我还是不太明白,能给我详细解释下吗?”
“ 固体粪便主体包含了绝大部分的肠道菌群,这些肠道菌群是利用结肠食物残渣的主要菌群,此外肠粘膜部位的黏膜部分也存在大量菌群,这些菌群的构成与粪便主体的菌群有所差异,除了食物残渣之外还可以利用粘液作为食物来源。” 分析人员耐心解释,
“ 梭杆菌属、韦荣菌属以及埃希氏菌属可能在肠粘膜部位含量较丰富,清肠过程后期随着水分排出的黏膜部分菌占据主要比例。”
“哦,我好像又明白了…” 小杨点了点头。
“对了,从图中看来,菌群差不多恢复了” 小杨的眼里闪烁着一丝喜悦。
“你说的没错”
“多亏了你们的饮食建议啊…” 小杨还没来得及长篇大论发表感谢,却又被阻止了。
“另外,健康人的肠道菌群具有恢复健康的能力”。
“能详细解释下吗?”显然又勾起了小杨的好奇心。
“你想啊,吃药,各种不健康的方式都会影响肠道菌群变化没错吧?而你现在却这么健康地站在这儿,某种程度上,肠道菌群有自己的恢复力,当然你可以理解为,整个肠道菌群像一个弹簧一样,有弹性,可受到干扰也可以恢复健康…” 分析人员说着,又甩给小杨一个链接,“可以看看这个文章”
看完后,小杨若有所思,“这么说,肠道菌群恢复力和饮食干预都有功劳,你能告诉我,你们是怎么想到这样的干预方式吗?”
“这…我们其实参考的是抗生素的情况,把你的肠镜检查比作一次抗生素的干扰,这么说明白吗?”
“哦,就是按照抗生素干扰处理呗”,小杨秒懂。
“是的,我们查阅相关文献结合临床经验…” 分析人员开始了讲述。
“ 与抗生素杀死菌群的情况类似,服用泻药将大量菌群排出同样也会导致菌群数量和丰度下降,和抗生素不同的是肠道不同部位的菌可能清除比例存在差异。”
小杨觉得很有道理,频频点头示意。
“ 如果在这种情况下直接摄入大量精制碳水化合物或游离糖,很容易使上述这些菌占据主要菌群,所以在菌群恢复的过程中需要结合自身原有菌群特点进行饮食调节和干预。”
“ 小杨你看,这是2020年一项针对抗生素服用后肠道菌群恢复情况的研究 ” 分析人员拿出早已看过几遍的资料。
研究显示,肠道菌群能否恢复(以是否恢复之前的菌群多样性为标准)包括以下几个阶段:
1、主要恢复菌首先利用黏蛋白多糖在肠粘膜中定植,部分可以通过降解复杂碳水化合物利用能量(如单形拟杆菌)
2、上述产物可以对下游其他菌进行交叉喂养,这部分菌其中一些可以生成短链脂肪酸(如柔嫩梭菌和罗氏菌属的一些菌),进一步为下游其他菌定植提供能量。以上所有菌及代谢物进一步帮助肠粘膜的重建,从而形成正向循环
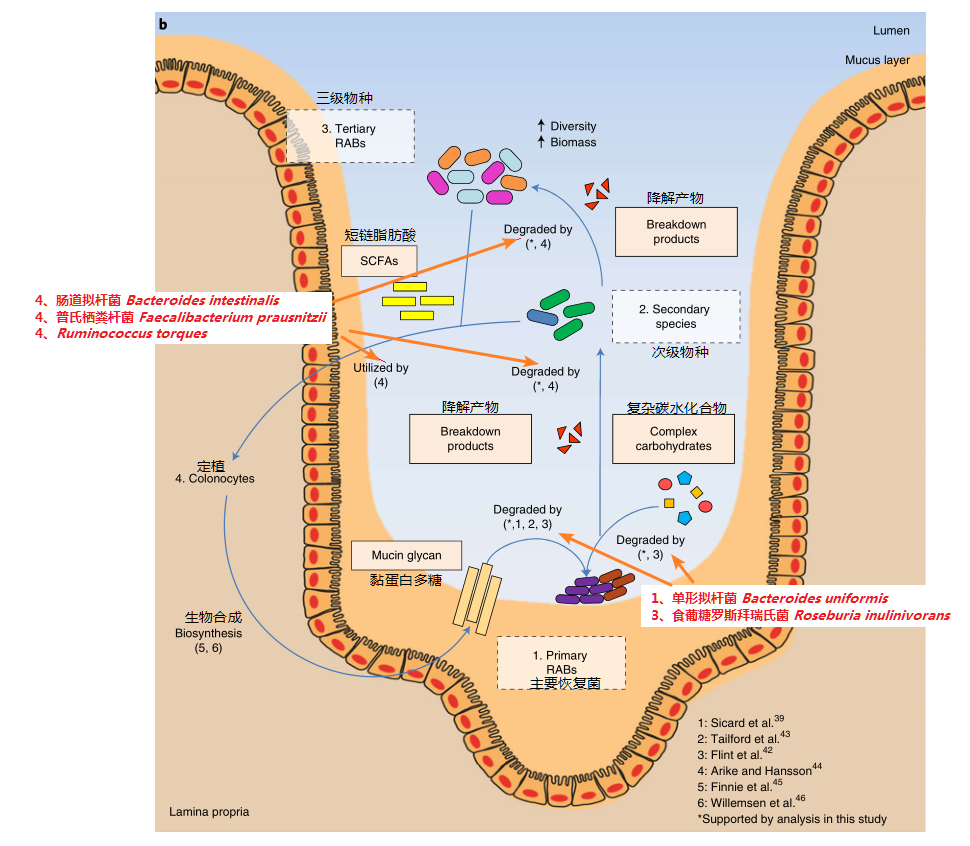
Chng KR et al., Nat Ecol Evol. 2020
从我们这个例子来看,核心菌群中就包括有主要重建菌:单形拟杆菌Bacteroides uniformis、多形拟杆菌Bacteroides thetaiotaomicron、食葡糖罗斯拜瑞氏菌Roseburia inulinivorans以及普氏栖粪杆菌Faecalibacterium prausnitzii 等,属于较易恢复的菌群结构。
“所以说,让我多吃膳食纤维和复杂碳水化合物,另外同时补充益生菌和低聚果糖,控制糖的摄入。其实是为了重建菌群对吧? ” 小杨觉得自己一下懂了好多。
“当然要尽可能地在短时间内,让你的主要核心菌大部分得到恢复。对了,你在第8天有改变了什么饮食习惯吗?”
“增加了低聚果糖的摄入,从每天10g增加到每天20g,怎么了?是有什么变化吗?” 小杨有些不解。
“ 看这里,第8天可以看到明显的粪杆菌属和罗氏菌属的丰度上升… ”
……
这一天,小杨感到格外轻松自在。
关于小杨的故事,到这里,告一段落。
文中描述的人物是真实案例(小杨是化名),前后多次进行谷禾肠道菌群健康检测,以及在医院做的肠镜检查。
我们在征得本人同意的情况下,将此案例发布于此。在这里,我们也要感谢小杨(化名)愿意提供部分报告信息,以便于我们分享时,大家能更好地理解。
最后,分享两个需要注意的点。
#
如果肠道菌群构成中:
单形拟杆菌Bacteroides uniformis、多形拟杆菌Bacteroides thetaiotaomicron、食葡糖罗斯拜瑞氏菌Roseburia inulinivorans以及普氏栖粪杆菌Faecalibacterium prausnitzii这几种菌占比很少,那么在进行如肠镜检查、抗生素或者较严重腹泻之后,需要特别注意肠道菌群的重建。
如果肠型构成中主要以普雷沃氏菌属或瘤胃球菌为主,且普氏栖粪杆菌Faecalibacterium prausnitzii 比例较低,那么需要考虑增加益生元的供给,并注意主食中以抗性淀粉为主,帮助第二级菌群定植,辅助重建。
总之,无论是关于肠镜检查,还是菌群恢复,都希望大家能从中得到一些收获。
谷禾健康
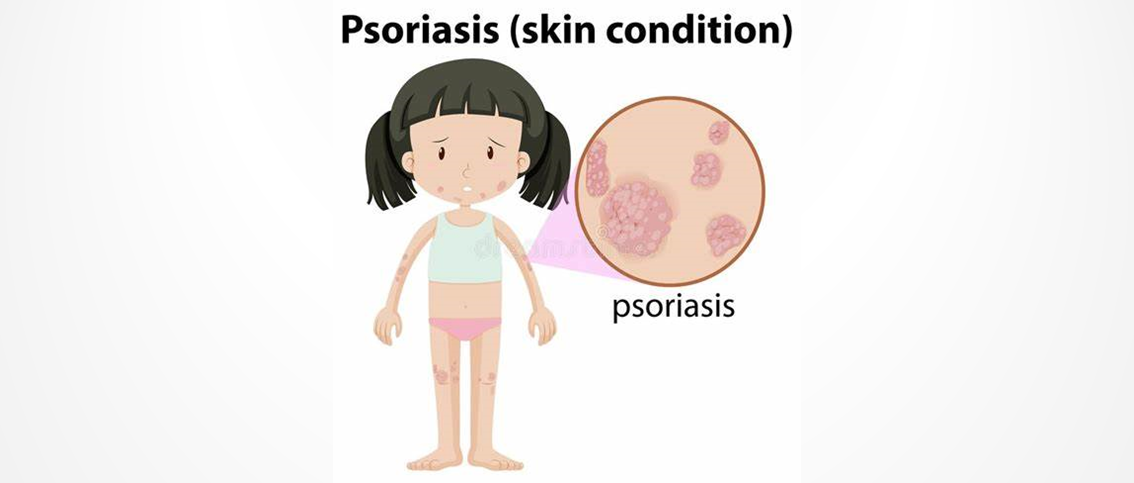
世界卫生组织报告说,银屑病(俗称“牛皮癣”)影响全世界近一亿人。 发病的平均年龄在15至35岁之间。

牛皮癣最常见的形式是斑块状牛皮癣
皮肤细胞异常快速地生长并在皮肤上堆积
多余的细胞会产生厚而有光泽的鳞片
带有干燥,发痒的红色斑块,有时会很痛
关于牛皮癣的常见类型详见附录。
大多数牛皮癣患者会经历症状的“周期”。有时可能会在几天或几周内出现严重的症状,然后症状可能会消失。在几周内,病情可能会再次发作。周而复始。没有症状的时候并不意味着牛皮癣不会复发。
有一点需要说明的是,牛皮癣并不会传染。

牛皮癣的症状是如何产生的?
与其说牛皮癣是皮肤病,倒不如说是一种自身免疫性疾病。自身免疫性疾病是身体自我攻击的结果。当牛皮癣发生时,T细胞会错误地攻击皮肤细胞。
这种错误的攻击会导致皮肤细胞生产过程过度运转。加速的皮肤细胞生成会导致新的皮肤细胞发育过快,然后被推到皮肤表面堆积。
那么,肠道微生物如何影响皮肤?肠-脑-皮肤轴如何发挥作用?肠道神经递质有什么样的调节功能?与牛皮癣之间有什么关系?具体的病理作用是什么?我们来详细了解一下。
牛皮癣患者肠道微生物组成
多项研究采用16S rRNA测序技术,分析了牛皮癣患者和健康人的粪便微生物组。结果显示,牛皮癣患者的肠道菌群结构与健康人不同。
在门水平上,牛皮癣患者的厚壁菌门和放线菌门丰度显著增加;在种水平上,牛皮癣患者的Ruminoccocus gnavus, Dorea formicigenerans,Collinsella aerofaciens丰度显著增加,而Prevotella copri ,Parabacteroides distasonis,Akkermansia muciniphila丰度显着降低。
最近的研究发现,牛皮癣患者的厚壁菌门和拟杆菌门的相对丰度在门的水平上是颠倒的,16种系统型在属水平上存在显著差异。
Hidalgo-Cantabrana 等人在牛皮癣患者中观察到严重的菌群失调,某些菌群多样性较低且相对丰度发生改变。研究表明,牛皮癣改变了患者肠道菌群的特性和功能。
牛皮癣和其他全身性炎症性疾病一样,涉及各种免疫途径的不适当激活,导致促炎性细胞因子升高。而肠道菌群参与促炎性Th17细胞的发育,调节炎症性肠病和肥胖症等疾病中的炎症。
前面提到牛皮癣患者肠道中的艾克曼菌(A. muciniphila)明显减少,该菌是可以增强肠道上皮的完整性并能抵抗全身性炎性疾病。
同样发现艾克曼菌减少的还有Scher等人,他们的研究,发现牛皮癣患者同时还伴有Ruminococcus, Pseudobutyrivibrio的相对丰度降低。而金黄色葡萄球菌(Staphylococcus aureus),白色念珠菌(Candida albicans)和马拉色菌(Malassezia)在皮肤和肠道中定植的增加与牛皮癣加剧有关。所以说,肠道和皮肤之间的联系是强烈的和双向的。
那么,肠道菌群是怎么对皮肤产生影响的呢?
取决于肠道微生物群及其代谢产物从肠道到皮肤的传播。某些致病细菌可以产生某些代谢产物,例如苯酚和对甲酚。 这些代谢物可以破坏皮肤屏障的完整性和表皮分化,减少皮肤的水合作用,并损害角化作用,这些作用与进入血液和在皮肤中积累有关。
短链脂肪酸(SCFA)是一种代谢产物,参与免疫细胞的活化和凋亡。 越来越多动物实验证据表明,慢性系统性炎症是肠道生态失调的主要后果。由于促炎性细胞因子的分泌,上皮通透性增加和激活的效应T细胞之间的不平衡,这导致了慢性全身性炎症的恶性循环。 这可能是肠道微生物组诱导皮肤损伤的众多机制之一。
肠道微生物的畸变导致多种炎症性皮肤病,例如寻常痤疮,脂溢性皮炎和牛皮癣。 越来越多的证据表明肠道菌群失衡会诱发炎症性皮肤病。
当然这也为我们提供了一种改善皮肤状况的可行方法——肠道菌群调节。基于这些发现,益生菌可以治皮肤炎症,方法简单,安全且便宜。(更多关于牛皮癣的预防措施详见后面章节)
关于微生物群和神经系统之间的干扰,研究表明宿主神经递质和/或相关途径在交流过程中起着关键作用。
斯托克斯和皮尔斯伯里首先基于各种实验证据和临床轶事,提出了肠-脑-皮轴概念,表明胃肠道调节介导了情绪和神经状态对皮肤的影响,情绪状态(如抑郁、焦虑等)会促进局部和全身性炎症。
研究还发现,情绪状态与炎症性皮肤状况之间的重要联系可以通过肠道菌群来调节。
最近的研究支持肠-脑-皮肤理论的证据。 我们前面的文章说过,肠道微生物会影响皮肤状况(痤疮的严重程度,点此查看 痘痘?粉刺?皮肤问题很可能是肠道问题),这与它们调节全身性炎症,氧化应激和情绪变化的能力是一致的。
牛皮癣患者肠道微生物通过分泌神经递质介导免疫系统和神经系统之间的相互作用
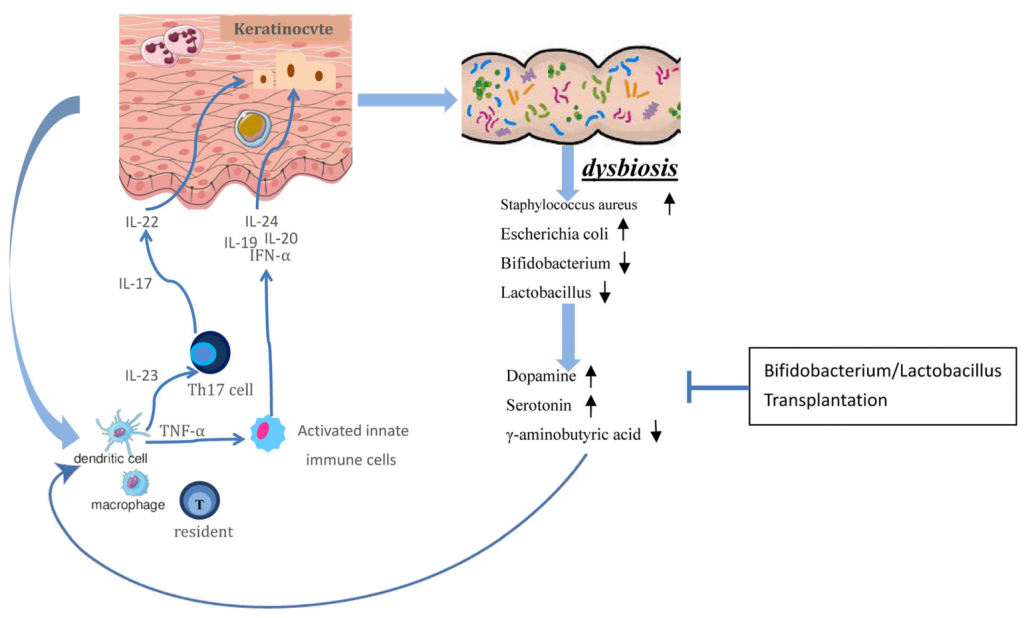

Guang Chenet al., Dermatol Ther (Heidelb),2020
细菌代谢产物对内源性中枢神经系统信号的激活涉及许多神经递质,包括GABA,5-羟基色胺(5-HT),去甲肾上腺素,多巴胺等。
以下对3种常见的神经递质展开讨论。
多 巴 胺
多巴胺是中枢神经系统中的一种重要神经递质,可控制认知、情绪、免疫和神经内分泌。
1. 在牛皮癣中,免疫系统和神经系统之间的串扰通过神经递质(如多巴胺)通过影响局部组织环境来调节免疫反应,并可能例如影响T细胞的活化状态和迁移。 免疫细胞还利用神经递质相互交流,以牛皮癣的组织特异性炎症为目标。
2. 证据表明,在31–88%的病例中,患者报告称压力是其牛皮癣的诱因。压力也是牛皮癣暴发的结果。 因此,所有的压力激素,包括多巴胺,都应该是牛皮癣的重要调节剂。
3. 多巴胺可以增加角质形成细胞的活性,这在细胞因子和趋化因子的释放中起作用。
5- 羟 色 胺
5-羟色胺是一种信号分子,通过旁分泌,内分泌和邻分泌调节多种生理过程,包括免疫系统,胃肠道和神经系统。超过90%5-HT是由胃肠道肠嗜铬细胞(EC)合成的,而5%的5-HT是在肠系膜神经元中合成的,还有一部分是在大脑中合成的。
血清素水平可以通过色氨酸羟化酶的帮助,通过分泌小分子(如SCFAs)来促进ECs产生血清素。
80年代,5-HT被定义为一种免疫调节剂,因为它具有抑制炎症的能力,包括牛皮癣,5-HT改变了血清素能系统失调患者的免疫反应。
GABA
GABA作为CNS的主要抑制性神经递质,具有广泛的生物学活性,包括调节突触传递,促进神经元发育和放松,预防失眠和抑郁。
越来越多的证据表明,GABA可以被细菌消耗和/或产生。乳酸菌和双歧杆菌是GABA的主要来源。
最近的一项人类研究中,从瘦到肥胖个体的粪便微生物组移植提高了血浆中的GABA水平,这表明微生物组可以控制GABA的产生水平。
GABA 的免疫作用
研究人员发现了GABA的各种生物活性,例如抗高血压,抗糖尿病,抗癌,抗氧化剂,抗发炎,抗微生物和抗过敏作用。
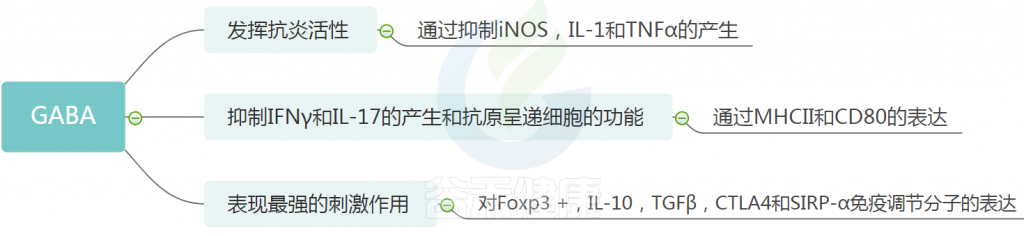

GABA与牛皮癣
牛皮癣患者通常有瘙痒,可能与GABA系统有关。 实验研究报道了牛皮癣患者皮肤中GABA配体和GABAA受体的表达增加,表明它们在与牛皮癣相关的发病和瘙痒中具有关键作用。 因此,GABA可以被认为是预防和治疗牛皮癣的潜在替代疗法。
表 神经递质产生菌(代表性的菌)
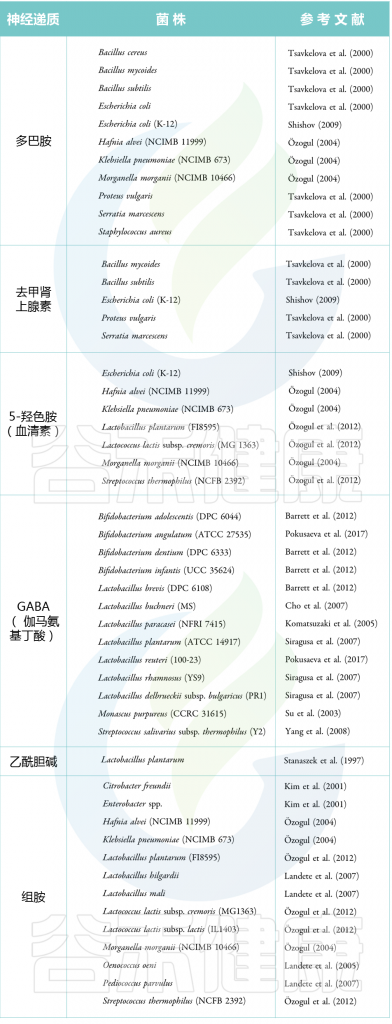

Guang Chenet al., Dermatol Ther (Heidelb),2020
综上,肠道菌群可能通过分泌神经递质来介导神经系统和免疫系统之间的串扰。FMT(粪菌移植)可能是牛皮癣的一种新型疗法。 需要进一步的临床试验以提供可靠的证据,验证潜在机制。
肠-脑-皮轴是神经传递调节中可能的通讯途径。通过了解这些途径及其与疾病特征的关系,可以设计肠道菌群介导的干预措施来操纵这些靶点以治疗牛皮癣。
虽然牛皮癣的症状可能反反复复,但至少可以做一些相应的预防措施,避免不断诱发其发作。
1. 减 轻 压 力
生活中的日常压力可能会对任何人产生负面影响,但对牛皮癣患者而言尤其成问题。身体容易对压力产生炎症反应。这种反应会引起牛皮癣发作。
——心理咨询
牛皮癣患者更容易出现抑郁等心理问题。当出现新斑点时,可能会不太自信。这种情况的持续循环会造成心理伤害。可以咨询专业的心理专家或加入牛皮癣患者正规论坛等进行交流。
——瑜珈
瑜伽促进身心放松,帮助缓解压力。
——冥想和其他放松技术。
尝试读书,跑步,与家人朋友聊天等。
2. 避 免 某 些 yao 物
某些yao物可能会干扰人体的自身免疫反应并引起炎症,从而引发牛皮癣。
3. 防 止 皮 肤 受 伤
有些人的皮肤损伤会进一步引发牛皮癣。这就是所谓的Koebner现象。引发牛皮癣的常见皮肤损伤包括晒伤和擦伤。
保护好皮肤可以帮助预防牛皮癣。如果外出时,应始终采取额外的预防措施,可以包括以下措施:
–外出时使用防晒霜并戴上帽子
–进行园艺时戴长袖手套
–在户外活动前喷杀虫剂
–参加户外活动时要谨慎
对于牛皮癣患者来说,过多的阳光会导致症状加剧。虽然说,适量的阳光可以缓解某些症状,保持10分钟左右,晒伤会引起耀斑。
4. 温 和 清 洁
牛皮癣患者应选择温和的保湿清洁剂,避免使用会导致皮肤干燥或刺激皮肤的配方。
避免含以下刺激成分:
月桂醇、肉豆蔻醇、棕榈醇、鲸蜡醇、二十二醇、视黄酸等。
5. 注 意 保 湿
寒冷干燥的气候也会加剧牛皮癣的症状。在这种天气下,皮肤水分较少,尤其热空调会更加干燥,实在太干的情况,最好配备加湿器。
洗澡不要超过10分钟,洗完澡后尽快保湿。可用毛巾拍干皮肤并涂上无气味的乳液,帮助锁住水分。
6. 避 免 感 染
感染会引发牛皮癣,因为感染会对免疫系统造成压力,从而引起炎症反应。
特别是链球菌性咽喉炎与小儿牛皮癣的发作有关。牛皮癣突然发作可能发生在耳痛,扁桃体炎或呼吸道或皮肤感染后。
如果发现有皮肤受伤(例如割伤或伤口),请确保正确清洁包扎以防感染。其他预防感染的方法包括:
–全天经常洗手
–避免与他人共享食物,饮料或饮食用具
–限制接触生病的人,尤其是儿童
7. 饮 食 健 康
如果是肥胖或超重患者,牛皮癣症状可能加重。因此,需要注意通过锻炼和饮食健康的饮食来控制体重。2013年发表在JAMA Dermatology上的一项研究发现,低热量饮食有利于改善牛皮癣。
另外,某些食物可能会引起人体内的炎症,从而引发牛皮癣症状。当然也有食物可以帮助减轻炎症和爆发现象。
可能引起炎症的食物包括:
红肉、乳制品、高脂食品、加工食品、精制糖、茄属植物、柑橘水果等。
可能减轻炎症的食物包括:
肥鱼,例如鲑鱼和金枪鱼
种子,例如亚麻籽和南瓜籽
坚果,尤其是核桃和杏仁
绿叶蔬菜,例如菠菜和羽衣甘蓝
关于抗炎饮食,促炎饮食可查看我们之前的文章:
8. 避 免 酗 酒
酒精是许多牛皮癣患者的诱因。哈佛大学医学院附属医院的一项研究发现,每周喝两到三杯酒(不是淡啤酒)和牛皮癣的患病率增加有关。
9. 避 免 吸 烟
如果患有牛皮癣,请避免吸烟。烟草会增加牛皮癣的风险,加剧牛皮癣症状。
10. 保 证 睡 眠
建议成年人每天睡七至八个小时。充足的睡眠可以支持免疫系统,并可以帮你保持健康的体重和控制压力。所有这些对于预防牛皮癣都很重要。
附录:
牛皮癣的常见类型
斑块状银屑病——常见类型
导致红色发炎的斑块,覆盖皮肤区域。这些斑块通常覆盖着发白的银鳞或斑块。
肠状牛皮癣——儿童时期很常见
引起小的粉红色斑点。常见的部位包括躯干,手臂和腿。很少像斑块状牛皮癣那样浓密或凸起。
脓疱性牛皮癣——多见于成人
导致白色的脓性水疱和大面积的红色发炎皮肤。
反向银屑病——特殊部位
导致皮肤发红,发亮,发炎。在腋下或乳房等部位皮肤皱褶周围发展。
红皮病性牛皮癣——严重且非常罕见
通常一次覆盖身体的大部分,鳞片经常脱落成大块或片状脱落。患有这种牛皮癣的人可能经常发烧或生病。
相关阅读:
主 要 参 考 资 料:
Mayo Clinic Staff. (2017). Psoriasis. mayoclinic.org/diseases-conditions/psoriasis/symptoms-causes/syc-20355840
Chen Guang,Chen Zai-Ming,Fan Xiao-Yan et al. Gut-Brain-Skin Axis in Psoriasis: A Review.[J] .Dermatol Ther (Heidelb), 2020.
Kurd SK, et al. (2010) The risk of depression, anxiety and suicidality in patients with psoriasis: A population-based cohort study. DOI:10.1001/archdermatol.2010.186
Rachakonda TD, Schupp CW, Armstrong AW. Psoriasis prevalence among adults in the United States. J Am Acad Dermatol. 2014 Mar;70(3):512-6. doi: 10.1016/j.jaad.2013.11.013. Epub 2014 Jan 2. PMID: 24388724.
Psoriasis. (n.d.).aad.org/public/diseases/scaly-skin/psoriasis
Women who drink beer more likely to develop psoriasis.(2010).sciencedaily.com/releases/2010/08/100816162645.htm
Mayo Clinic Staff. (2018). Psoriasis. mayoclinic.org/diseases-conditions/psoriasis/symptoms-causes/syc-20355840
谷禾健康
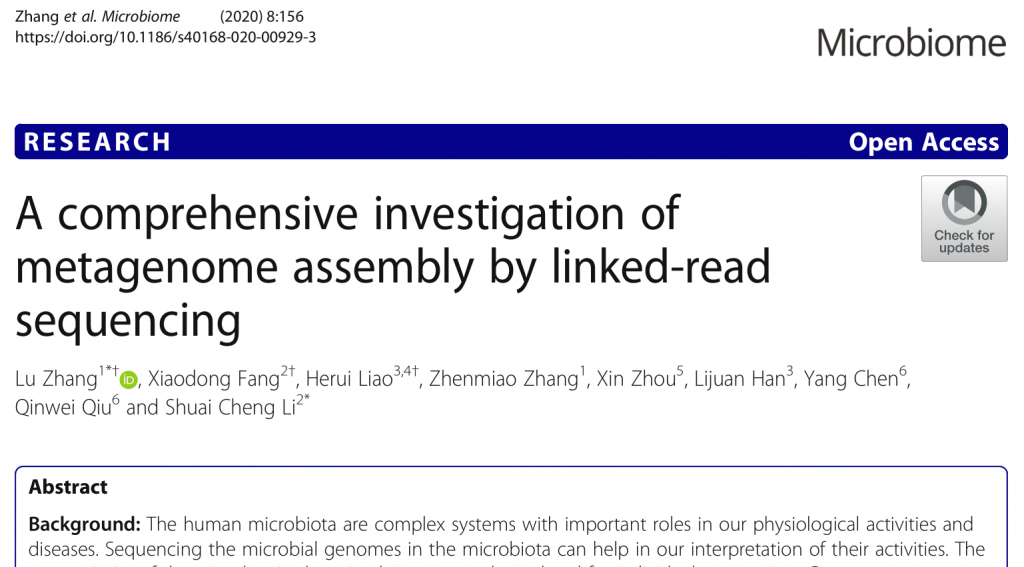
链读测序(Linked-read sequencing)通过将相同的barcode与长DNA片段(10-100kb)的序列连接在一起,能够消除其中的一些错读,从而改进宏基因组组装。但目前还不清楚在使用链读测序时参数的选择对组装的质量的影响如何。
近日,香港浸会大学研究人员发表文章 “通过链读测序对宏基因组组装全面研究”。

模拟数据和模拟菌群中的分析结果表明,模拟数据(simulated data)中读取深度(C)与组装序列的长度呈正相关,但对组装序列的质量影响不大,模拟菌群的研究中读取深度(C) 对组装序列的质量以及被注释为基因组草图的bin的比例有轻微影响。
另一方面,宏基因组组装质量受CR(每个短读长片段的平均深度)和CF(由长DNA片段计算的基因组的平均物理深度)的影响。对于相同的读取深度,较深的CR 会产生更多的基因组草图,而较深的CF 会提高基因组草图的质量。
还发现μFL(未加权的DNA片段的平均长度)对组装有边际效应,而NF/P(每个分区的片段数)对局部组装涉及到的偏离目标读数(off-target reads)有影响,即较低的NF/P值会通过减少off-target序列的错读而有更好的组装效果。
总体而言,与Illumina的短读长相比,使用链读改善了组装中重叠群的N50,但与PacBio CCS的长读长相比则没有改善。
人体微生物群是一个复杂的系统,在生理活动和疾病中起着重要的作用。对微生物群中的微生物基因组进行测序可以帮助我们研究其功能。
然而,微生物基因组序列很难获得,微生物群中的绝大多数微生物不能被分离出来进行单个测序。目前的宏基因组项目中使用短读长测序对混合的微生物基因组进行测序。
这些结果在基因组组装过程中是有错读的,导致微生物基因组的完整性和重叠群的连续性结果不理想。长读长测序已经被用来尝试减轻这些问题,如Nicholls等人和Sevim等人的研究。特别是Moss等人的研究,其成果优化了纳米孔测序的长读长文库制备方案,并获得了更完整的细菌基因组。
但实际应用中,长读长测序是昂贵的。虽然链读序列(linked-reads)的基因组组装的质量无法与PacBio CCS的长读长相提并论,但其低成本和高碱基质量的优点是值得去使用的。
01 三组链读序列数据集的来源及构成:
模拟数据(simulated data):
从MBARC-26数据集中下载了23个细菌和3个古细菌菌株,按丰度分类,L-sim,低丰度微生物,摩尔浓度<10-15;M-sim,中等丰度微生物,10-15 < 摩尔浓度 < 10-14;H-sim,高丰度微生物,摩尔浓度 > 10-14
模拟菌群(mock community):
(ATCC MSA-1003)是一个由20个菌株组成的池,同样按丰度分类,L-mock,低丰度微生物;M-mock,中等丰度微生物;H-mock,高丰度微生物;UH-mock,超高丰度微生物。
人类肠道菌群:
一份来自健康的中国人粪便样本
02 DNA提取、文库制备和测序:
对于模拟菌群,从ATCC 20菌株交错的混合基因组材料中提取DNA,不进行大小选择。
对于人类肠道菌群,用Qiagen QiAaMP粪便迷你试剂盒提取DNA,去掉5kb以下的DNA片段。
脉冲场凝胶电泳后,按照厂商的说明制备10x Chromium文库。使用Illumina XTen双端2x150bp测序。人类肠道微生物组的DNA也被用于标准的Illumina XTen短序列测序。
03 DNA长片段重建和链读序列二次抽样:
Long Ranger v2.2.1用于纠正barcode碱基错误,计算PCR重复率,并完成barcode感知的链读序列比对。
使用BWA-MEM v0.7.17比对短序列和没有barcode的链读序列。根据映射得到的具有共同的barcode的短序列的坐标重建DNA长片段。
链接序列首先按barcode排序,然后按它们的映射坐标排序。如果最近的barcode序列大于50kb,则终止延伸长DNA片段。每个片段必须包括至少两个具有共同barcode的成对序列,并且最小长度为2kb。
04 宏基因组组装:
对于链读序列的组装,没有 barcode 的链读序列首先由 metaSPAdes v3.11.1使用默认参数组装为“seed”重叠群,并通过BWA-MEM v0.7.17与重叠群比对。
最后使用 Athena-meta v1.3 通过汇集在 scaffold 中的两个“seed”重叠群里共享相同 barcode 的序列进行局部组装。
05 组装效果评估:
MaxBin v2.2.4将长于1kb的重叠群分组到bins中,并通过CheckM v1.0.12评估其完整性和污染率。
Quast v5.0.0统计了基础信息,如重叠群的N50、NG50、NGA50、总比对长度(total aligned length)和基因组覆盖率(genomic coverage)。
Kraken v0.10.6基于内置数据库MiniKrakenDB为bins做物种注释。每个bins都作为一个基因组草图,被分类为高质量的(完整性>90%,污染率<5%),中等质量的(完整性≥50%,污染率<10%),低质量的(完整性<50%,污染率<10%)
来自人类肠道菌群和Illumina短序列链读序列二次抽样的组装效果统计
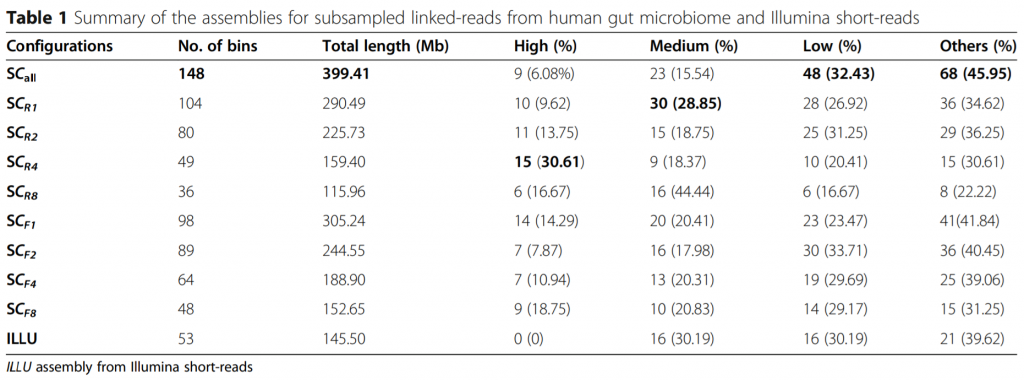

ILLU,Illumina短序列的组装
SC-all,模拟菌群和人类肠道菌群总共的两个测序lane链读序列
在链读测序中,有四个关键参数可能会影响宏基因组组装,如下图。
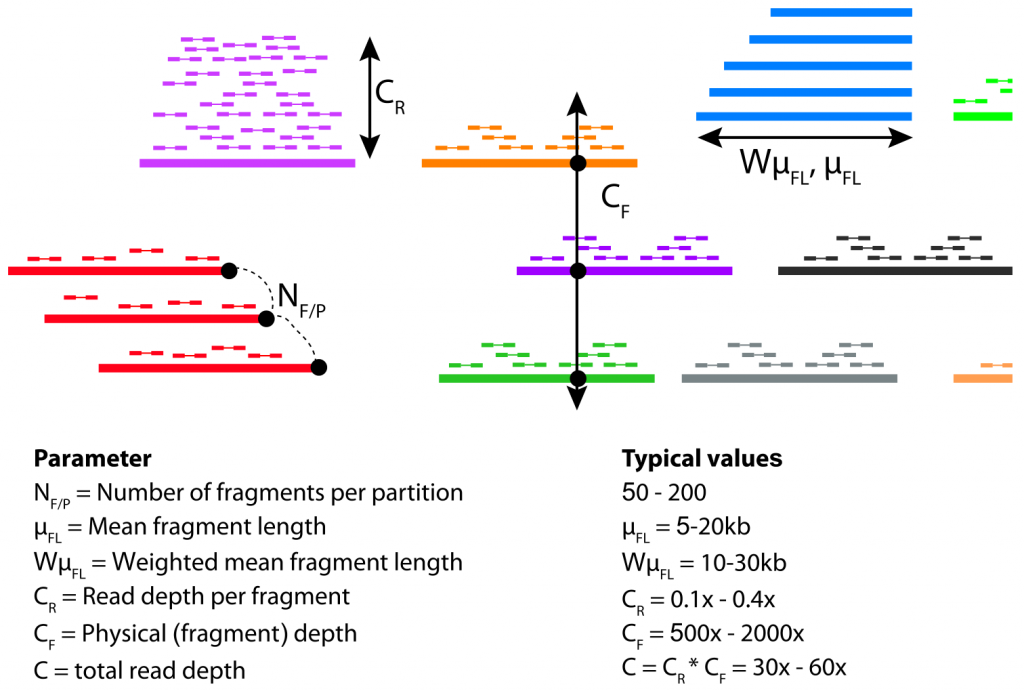

这些参数中有几个是相互依赖的。例如,输入DNA的量越大,CF和NF/P都会增加,CR就会降低;CF和CR的绝对值是由总读取深度(C)增加多少来设置的,因为CR×CF=C。
L-sim,模拟数据中的低丰度微生物,青色
M-sim,模拟数据中的中等丰度微生物,蓝色
H-sim,模拟数据中的高丰度微生物,红色
L-mock,模拟菌群中的低丰度微生物
M-mock,模拟菌群中的中等丰度微生物
H-mock,模拟菌群中的高丰度微生物
UH-mock,模拟菌群中的超高丰度微生物
“-”表示测序lane的倒数,例如MSCR4/MSCF4表示四分之一测序lane的序列被二次采样
MSCR-,模拟菌群中的短序列
MSCF-,模拟菌群中的长DNA片段
MSC-1,模拟菌群和人类肠道菌群总共的一个测序lane链读序列
SC-all,模拟菌群和人类肠道菌群总共的两个测序lane链读序列
相关阅读:
参考文献:
Zhang L, Fang X, Liao H, Zhang Z, Zhou X, Han L, Chen Y, Qiu Q, Li SC. A comprehensive investigation of metagenome assembly by linked-read sequencing. Microbiome. 2020 Nov 11;8(1):156. doi: 10.1186/s40168-020-00929-3. PMID: 33176883; PMCID: PMC7659138.
He S, Chandler M, Varani AM, Hickman AB, Dekker JP, Dyda F: Mechanisms of evolution in high-consequence drug resistance plasmids. MBio 2016;7(6): e01987–16.
Peng Y, Leung HC, Yiu SM, Chin FY. IDBA-UD: a de novo assembler for single-cell and metagenomic sequencing data with highly uneven depth.Bioinformatics. 2012;28(11):1420–8.
Li D, Liu CM, Luo R, Sadakane K, Lam TW. MEGAHIT: an ultra-fast singlenode solution for large and complex metagenomics assembly via succinct de Bruijn graph. Bioinformatics. 2015;31(10):1674–6.
Nurk S, Meleshko D, Korobeynikov A. Pevzner PA: metaSPAdes: a new versatile metagenomic assembler. Genome Res. 2017;27(5):824–34.
Nicholls SM, Quick JC, Tang S, Loman NJ. Ultra-deep, long-read nanopore sequencing of mock microbial community standards. Gigascience. 2019;8(5): 1–9.
Sevim V, Lee J, Egan R, Clum A, Hundley H, Lee J, Everroad RC, Detweiler AM, Bebout BM, Pett-Ridge J, et al. Shotgun metagenome data of a defined mock community using Oxford Nanopore, PacBio and Illumina technologies. Sci Data. 2019;6(1):285.
谷禾健康
我们之前几篇文章都讲过关于抑郁,焦虑和肠道菌群的关系。
最新研究速递 | 柳叶刀:肠道微生物群在神经系统疾病中的作用
不仅如此,还和微量元素、维生素缺乏有关。
1. 微 量 元 素 篇
锌是帮助调节许多生物过程(包括我们的情绪)的核心营养素之一。锌的饮食来源多种多样,尤其是在红肉,家禽和鱼类中。当人的锌水平低时,可能会出现焦虑,抑郁,失眠和情绪失调等状况。
Petrilli 等人研究发现抑郁症和精神病患者的锌含量低。在患有帕金森氏病,阿尔茨海默氏病,唐氏综合症和多动症的患者中也发现了锌缺乏。
对于缺锌的患者,补锌已被证明有助于改善抑郁症状,是 “自然的抗抑郁药”。

一项研究表明,与仅接受SSRI治疗的患者相比,补充锌和SSRI可以更有效地改善重度抑郁症。对实验动物进行锌的长期治疗具有与抗抑郁药相同的作用。
注:SSRI是一类新型的抗抑郁药
当然,在评估锌水平和补充需求时,还需要考虑许多其他因素(例如炎症,其他微量元素的吸收等)。
碘缺乏,特别是在早年间缺乏,会阻碍身体和大脑的发育。碘是甲状腺激素必不可少的组成部分,这对大脑的发育和维持至关重要。碘缺乏症困扰着非常多人,但实际上因碘缺乏引起的智力障碍是可预防的。
大多数植物性食品的碘含量都非常低。素食主义者通常相对容易缺碘。
大脑非常需要铁。铁是产生神经递质(血清素,多巴胺和去甲肾上腺素),脑能量生成,海马功能(记忆),细胞信号传导和婴儿大脑发育所必需的。
许多植物性食物中的铁含量低于动物性食物,且更难吸收。素食者血液中铁的含量与杂食者差不多,但是他们体内的总铁存储量(储备量)较低。

2. 维 生 素 篇
维生素B在调节我们的心理健康方面也起着重要作用。
“B族维生素” 是指有助于人体细胞正常运作的八种必需营养素。B族维生素们既可以一起协同工作,又可以发挥各自的独特功能。

B维生素的八种类型包括:
B1,B2,B3,B5,B6,B7,B9,B12
某些与心理健康有关的疾病也可能与维生素B缺乏症并存。例如,早期研究表明,自闭症儿童的B6偏低,补充B6后,有些儿童表现出明显的改善,并且是第一次开始说话。
维生素B1,B3,B6
已成功用于治疗许多患有焦虑症和其他心理疾病的患者。在小鼠研究中,实际上发现VB3与苯二氮卓类和巴比妥类具有共同的特性。
维生素B12
有抑郁症患者存在B12缺乏症,而B12缺乏症的人比非缺乏症的人更容易患严重抑郁症。B12缺乏的其他症状可包括疲劳,嗜睡,躁狂等。
素食主义者饮食中几乎不含维生素B12,长期严重缺乏B12会致命。素食主义者可以服用补品或食用强化酵母(未经强化的天然酵母不包含维生素B12)。
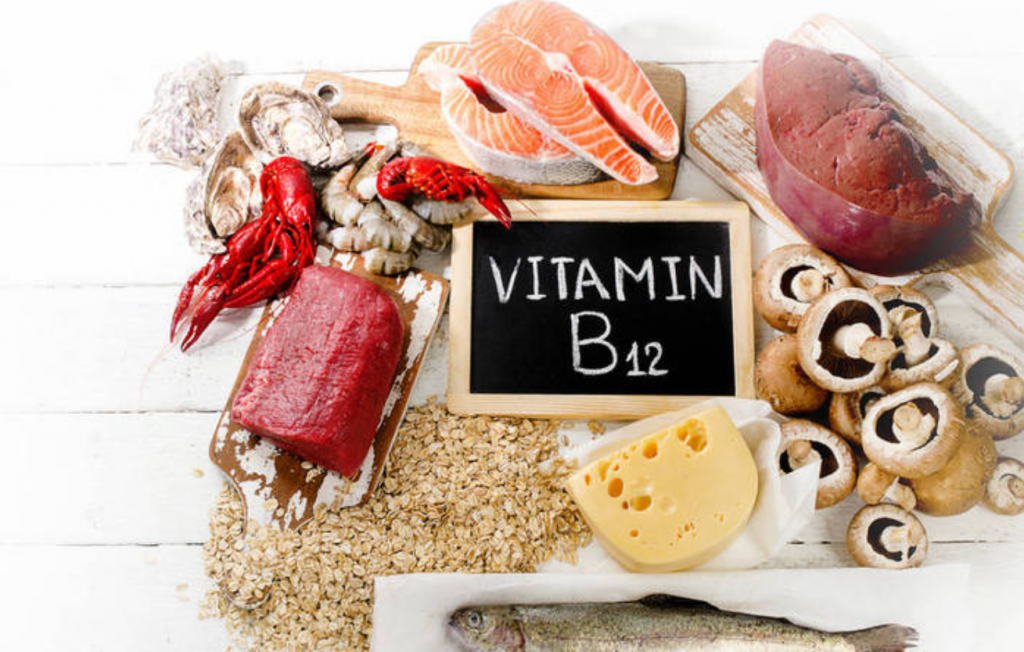

维生素B12缺乏很普遍。一些研究发现,多达86%的成年人(无论选择哪种饮食)都缺乏。研究人员报告说,其价值范围很广,总的来说,素食主义者的B12含量往往较低。
B类维生素包括B2,B6,B9,B12也已被证明有助于治疗精神分裂症的症状。
维生素D——“阳光”维生素,对我们的心理健康也至关重要。大约50-90%的维生素D是由阳光照射产生的,其余的来自饮食。
维生素D缺乏症的人数众多,一些专家认为维生素D缺乏症是“全球健康问题”。
目前还不清楚维生素D与精神障碍之间的确切关系,但发现存在维生素D缺乏症风险的人群患抑郁症的风险增加,而维生素D含量较低可能会导致或加剧抑郁症状。
神经退行性疾病,肥胖,糖尿病,高血压,纤维肌痛,慢性疲劳综合症和骨质疏松症也与维生素D缺乏症有关。
关于神经退行性疾病与菌群详见文章 最新研究进展 | 行为和神经退行性疾病中的肠道微生物分子
维生素D3

维生素D3是我们身体需要的维生素D形式。在大脑的生长和发育中很重要,调节大脑中的钙水平,帮助保护脑细胞免受有害的氧化作用,并支持海马体(大脑记忆中心)的健康。
大多数研究发现,纯素食者的血液中维生素D3含量较低,并且在冬季,素食者更有可能出现维生素D3不足。
维生素K1在许多植物性食品中都丰富,但是维生素K2同样重要,而且常常被忽略。

维生素K2有多种形式,但我们需要的基本形式称为MK-4。在大脑中,需要MK-4来构建鞘脂的关键细胞膜成分,以及维持脑细胞的整体健康和功能。
维生素K2的MK-4形式仅存在于动物性食品中。
那么,是不是这些微量营养素补充越多越好呢?
国际自闭症研究会议上,约翰·霍普金斯大学研究人员提出:怀孕期间叶酸和维生素B12含量过高的女性,孩子患自闭症风险较高。
我们看看研究人员是如何得出这样的结论:
样本量及来源
研究人员分析了1391名母亲及其子女的数据。在孩子出生时招募志愿者,然后追踪长达15年。
检测指标及相关调查
在分娩的头几天检查母亲的血液中叶酸和维生素B12的水平。所有母亲均在怀孕期间进行了有关产前维生素和其他补充剂使用情况的调查。
发 现
在1391名儿童中有107名被诊断出患有自闭症谱系障碍,但这种自闭症的风险并不是在所有母婴中平均分布的。
· 每周服用三至五次产前复合维生素的母亲,孩子患自闭症的可能性较小。
·在头三个月服用这些补充剂的母亲生自闭症孩子的可能性要低67%
·在中晚期服用,其孩子自闭症可能性要低62%
·在妊娠中期服用,孩子患病的可能性要低57%
至此,服用产前维生素听起来很不错吧,问题来了:
在1391名母亲中,有95名母亲的VB12血液水平被世界卫生组织认为过高。在这些母亲中,有15个孩子被诊断出患有自闭症谱系障碍,这一风险是其他母亲的三倍。
同样,140名母亲的血液中叶酸水平“过高”,其中16名儿童患有自闭症谱系障碍。
而这其中有21位母亲两种维生素都“过量”。
更夸张的是,这21位母亲,有10个孩子被诊断出患有自闭症。换句话说,维生素水平过高的人中有将近一半有自闭症儿童。

当然,此研究也存在缺陷。
缺点之一是血样是在孩子出生后立即采集的,而不是在怀孕期间采集的。
此外也有猜测,是否因为她们知道正在接受研究而服用较大剂量的维生素?这些不得而知。
综上,如果您或者您家人现在正在孕育新的生命,需要考虑维生素服用的剂量以及评估相应风险。
换句话说,可以服用,但不宜过量。
相关阅读:
主要参考文献:
Naeem Z. (2010). Vitamin d deficiency- an ignored epidemic. International journal of health sciences, 4(1), V–VI.
Penckofer, S., Kouba, J., Byrn, M., & Estwing Ferrans, C. (2010). Vitamin D and depression: where is all the sunshine?. Issues in mental health nursing, 31(6), 385–393. doi:10.3109/01612840903437657
Ranjbar, E., Kasaei, M. S., Mohammad-Shirazi, et al., (2013). Effects of zinc supplementation in patients with major depression: a randomized clinical trial. Iranian journal of psychiatry, 8(2), 73–79.
Petrilli, M. A., Kranz, T. M., Kleinhaus, K., Joe, P., Getz, , et al., (2017). The Emerging Role for Zinc in Depression and Psychosis. Frontiers in pharmacology, 8, 414. doi:10.3389/fphar.2017.00414
Grabrucker A. M., Rowan M., Garner C. C. (2011). Brain-delivery of zinc-ions as potential treatment for neurological diseases: mini review. Drug Deliv. Lett. 1, 13–23.
免责声明:本公众号内容仅作交流参考,不作为诊断及医疗依据,身体问题请及时就医。
图片来自网络,侵删
谷禾健康
功能性腹痛性疾病(FAPD)是儿童期最常见的疾病,全世界25%的儿童和婴儿受其影响。
功能性腹痛性疾病
小儿功能性腹痛性疾病,目前称为肠脑相互作用障碍,包括肠易激综合症,功能性消化不良,腹型偏头痛和功能性腹痛。
<罗马IV诊断标准见附录>
近日,英国和美国的研究科学家联合发表在《NATURE REVIEWS | DISEASE PRIMERS》上的一篇综述文章题为:“Paediatric functional abdominal pain disorders”(小儿功能性腹痛症)。

该文总结了FAPD患病率和致病性的最新进展,并特别关注了早期生命的影响和构建。对食源性发病机理和病理生理学有了更深入的了解,包括肠道器官(炎症,运动和微生物群),核心因素(心理方面,某些大脑区域的敏感性和/或连通性或活动性差异)以及外在因素(感染)。
此外,讨论了当前的诊断方法并着重介绍了这些疾病的治疗选择,特别是IBS和FAP-NOS。强调可用的药理干预措施仅限于儿童,因此,干预管理重点落在综合方法上,包括针对精神的干预措施(催眠疗法和认知行为疗法),饮食(益生菌)和经皮神经电刺激。这些方向将有助于理解病理生理学并更好地治疗这些疾病。
FAPDs的特征通常内脏痛觉过于敏感以及内脏刺激中枢感知增加而导致残疾,是遗传易感性和早期生活事件背景上叠加的社会心理因素和医学因素的最终结果。
功能性消化不良的症状特征主要来自胃肠道近端,涉及上腹部腹痛和/或餐后饱胀和/或早期饱腹感。
腹型偏头痛的特点是发作性长时间发作,剧烈,急性脐周,中线或弥漫性腹痛。这些痛苦的发作通常无能为力并干扰正常生活。
这些发作通常但不总是与其他症状(例如厌食,恶心,呕吐,头痛,畏光等)相关,这些症状可能在疼痛持续时间之前或与疼痛持续时间同时发生,并且这种症状性发作可能相隔数周至数月不等。
风险因素如下:
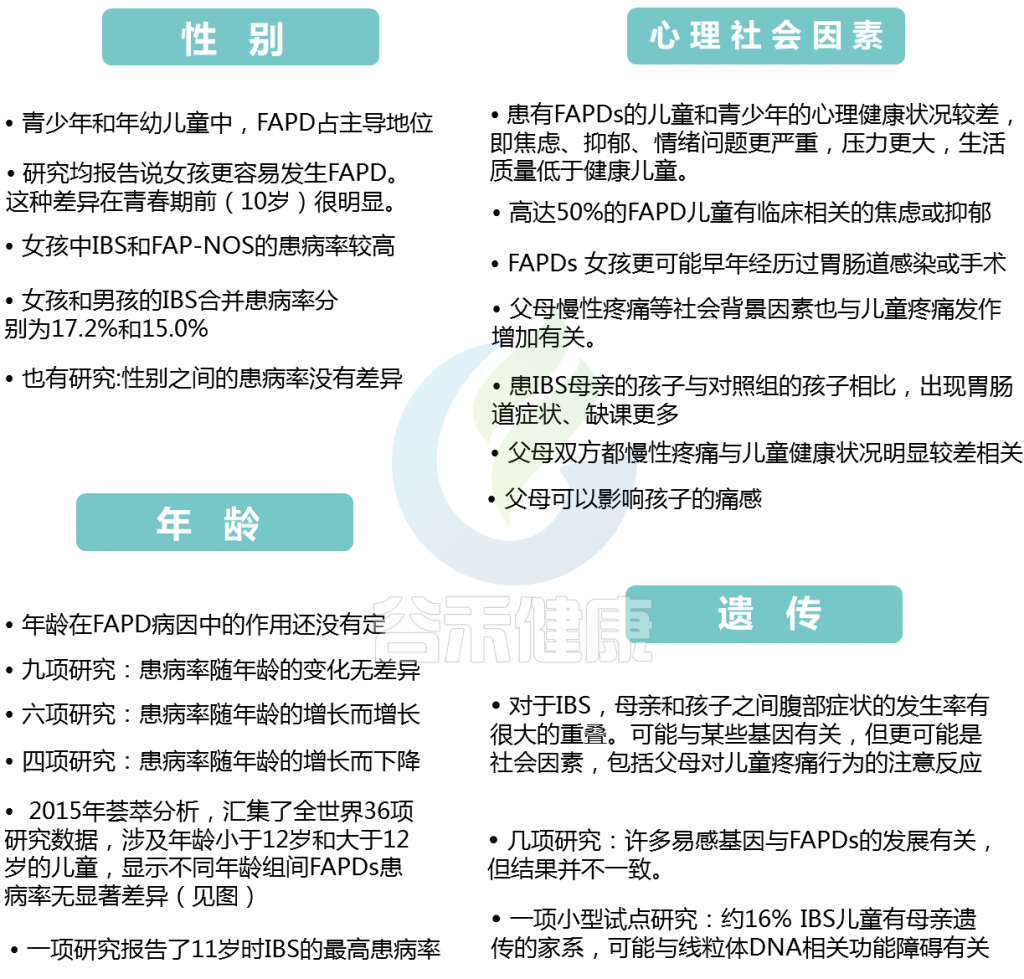

FAPDs是一种复杂的疾病,似乎是由于一个或多个元素的功能和/或更微妙的结构完整性的破坏造成的菌群-肠-脑轴。这些条件下相互作用的复杂性和多面性被整合到一个生物心理社会模型中。
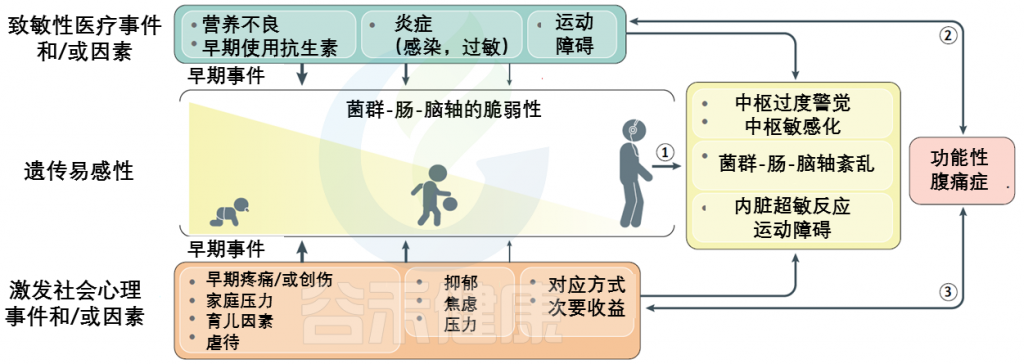

该模型的关键组成部分是内脏超敏反应和中枢敏感化。
内 脏 超 敏 反 应
内脏超敏反应描述了对周围信号的知觉反应(即痛觉过敏),并且可能是内脏传入信号处理变化的结果或疼痛下调变化的结果(例如,中枢敏感化)。
表现:疼痛的感觉阈值降低,也就是稍微一点点刺激就会感到疼痛。
可能原因:在肠扩张期间或由于暴露于食糜的化学成分改变引起,部分解释了对诸如饮食调整和抑酸等治疗的反应。
潜在诱因:炎症,感染和压力
从本质上讲,这些触发因素可引起粘膜通透性变化并导致炎症,释放促生因子,包括5-羟色胺,组胺,NGF,蛋白酶和前列腺素,它们能够激活传入伤害感受器(痛觉神经)上的受体,引起急性疼痛以及持久的功能和结构改变,这是维持慢性疼痛的关键。
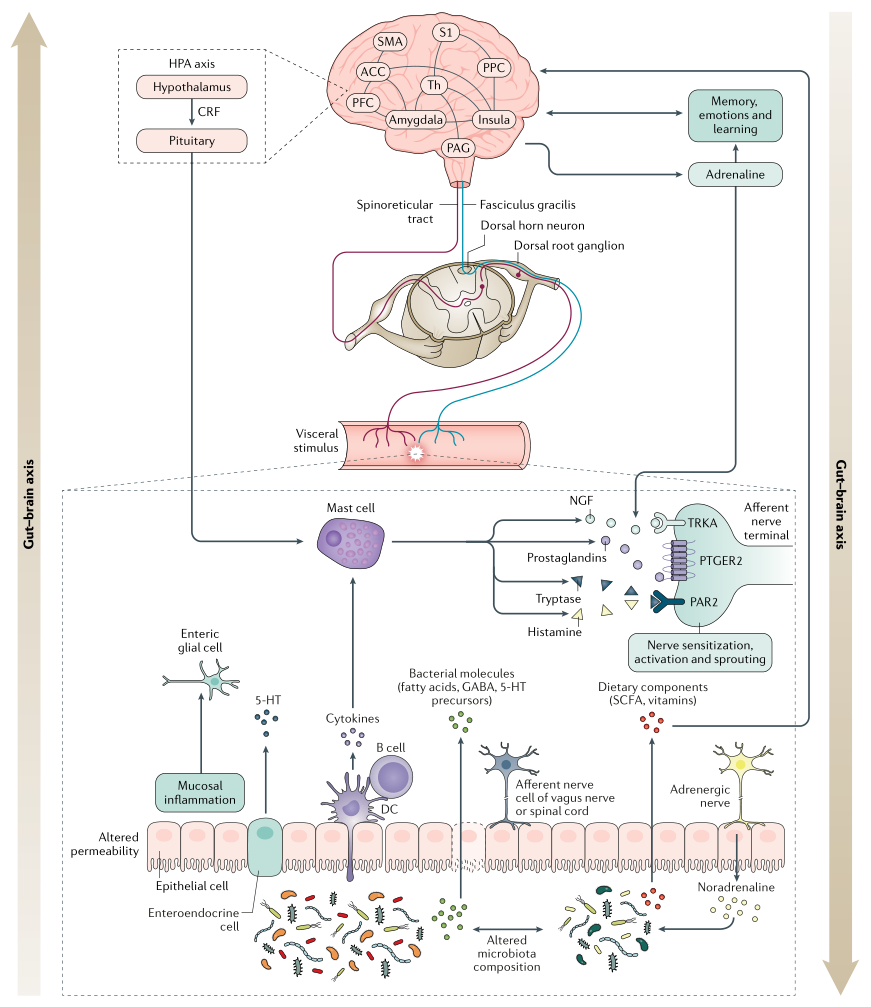

中 枢 敏 感 化
中枢敏化是指通过增强中枢神经系统内的神经元功能和神经信号来放大疼痛敏感性的现象,会引起疼痛超敏反应,并且是一种发展和维持慢性疼痛的机制。
除了疼痛超敏反应外,中枢敏化还会导致脑部活动的继发性变化,可以通过电生理或成像技术进行检测。患有FAPD的个体可能更倾向于发展来源不明的中央致敏。
2018年进行的一项系统性回顾涉及12项病例对照研究,发现功能性腹痛儿童的继发性痛觉过敏和皮质伤害感受改变。
生 命 早 期 事 件
在小儿FAPD中,损伤时机比导致微生物群-肠-脑轴成分破坏的多种因素或该轴本身的破坏更为关键。在生命的头二十年中,尤其是从围产期到儿童时期直至青春期,支撑其功能的肠脑轴所有元素的发育和成熟的关键过程至关重要。
包括手术(例如脐疝和幽门狭窄),细菌性胃肠道感染,炎性或免疫介导的疾病(例如乳糜泻,炎性肠病),以及在生命的最初几个月中发生无害的侮辱,例如婴儿期对牛奶过敏和早期使用抗生素等。
神 经 免 疫 相 互 作 用
在一些患有FAPD的儿童中,证据表明存在低度的肠道炎症,并在发病机理中发挥了神经免疫相互作用的作用。
一项研究发现,IBS患儿回结肠结肠粘膜中靠近神经的肥大细胞数量增加。神经纤维相关的肥大细胞计数与腹痛的强度和疼痛发作的频率相关。
胃 肠 蠕 动
胃肠动力异常促进FAPD的病理生理。具有上消化道症状的患者可能有胃排空延迟和/或胃适应性降低或两者都不存在。功能性下消化道症状的患者可能延迟,加速或正常结肠转移,和/或骨盆底运动障碍(肌肉协调障碍导致试图放松骨盆底肌肉时收缩)。
—功能性消化不良
—肠易激综合征
微 生 物 群
FAPD与肠道微生物群的多样性和菌群组成有关,尤其是IBS。2019年,一项系统评价86评估了健康个体和IBS患者(成人和儿童)的肠道菌群组成。发现双歧杆菌属的丰度下降。IBS患者中的抗炎作用与Faecalibacterium spp,尤其是Faecalibacterium prausnitzii一样,具有抗炎作用。
IBS患者的粪便微生物群的多样性降低或保持不变。粪便微生物群组成或代谢组组成可以预测患者可能从饮食中获益。
除细菌外,真菌或病毒也可能在FAPD病理生理中起作用。但是,有关真菌菌群失调或病毒菌群失调的可用数据有限,目前的研究主要集中于炎症性肠病,而不是IBS。
营 养
在患有FAPD的儿童中起着至关重要的作用。
饮食失调(例如神经性贪食症)可能导致IBS患儿肥胖的发生率增加。
碳水化合物的吸收不良可引起胃肠道症状。吸收不良可能与特定的酶缺乏症有关(例如乳糖酶缺乏症中的乳糖;蔗糖和异麦芽糖酶缺乏症中的蔗糖和淀粉)或与碳水化合物(如果糖,山梨糖醇或甘露醇)的吸收能力有限有关。
在糖较小的情况下,所引起的渗透负荷可导致肠腔膨胀小和快速转运。对于诸如果聚糖等较大的糖,人不具有消化的酶促能力,因此,吸收不良的糖会被结肠菌群发酵,从而导致气体形成和潜在的结肠扩张。
心 理 因 素
肠脑轴的生理很复杂,包括传入和传出成分。
下丘脑-垂体-肾上腺轴通过皮质醇和促肾上腺皮质激素释放因子的释放(在压力条件下均会增加),以及通过刺激肥大细胞和诱导脯氨酸释放的反馈回路,促进肠-脑相互作用。
研究表明,在成年人和有FAPDs的儿科患者中,压力都会增加肠道炎症标志物,如粪便钙卫蛋白和CRP。
肠道与大脑的相互作用涉及自上而下和自下而上的过程,因此,肠道菌群也可以影响脑功能。在压力条件下,肠道菌群可以增加上皮屏障的通透性,使抗原和/或病原体能够通过并引起炎症反应。由此产生的循环性促炎细胞因子可能会与中枢神经系统通讯,刺激大脑的免疫反应,从而可能导致或加重心理症状(例如焦虑和抑郁)。
几项研究表明,与健康儿童相比,患有家族性帕金森病的儿童的心理压力和行为问题有所增加。心理因素可能既是FAPD的起因,也是后果。
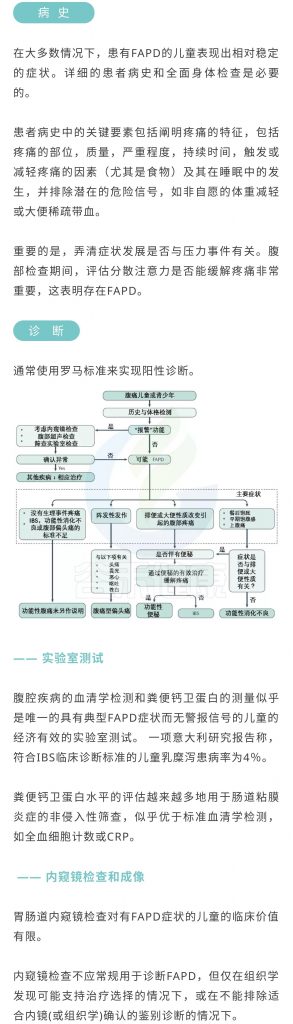

无论采用哪种治疗方法,患者与临床医生之间有效的沟通和病人教育,是成功进行FAPD管理的核心。必须花足够的时间向每位患者的照护者解释诊断,并讨论生物心理社会模型。
FAPD的管理受到几个因素的限制
1. 由于FAPD生物心理社会特性,每个孩子都有一套独特的病理生理因素,并且对疗法的反应也不同。
2. FAPD患儿的证据基础很小,许多治疗建议都是基于对成年人的研究。 儿童通常不会像成年人那样做出反应。
3. 一些有效的治疗方法是行为疗法(饮食疗法和心理疗法),由于缺乏专职医疗保健专业人员以及缺乏保险,这些方法并不容易。
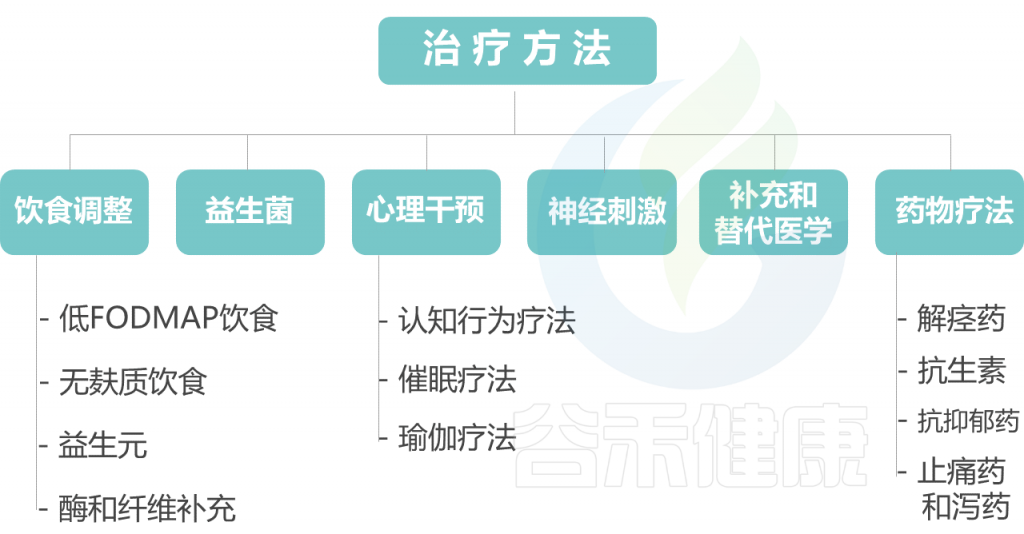

以下对每种治疗方法展开讨论。
饮 食 调 整
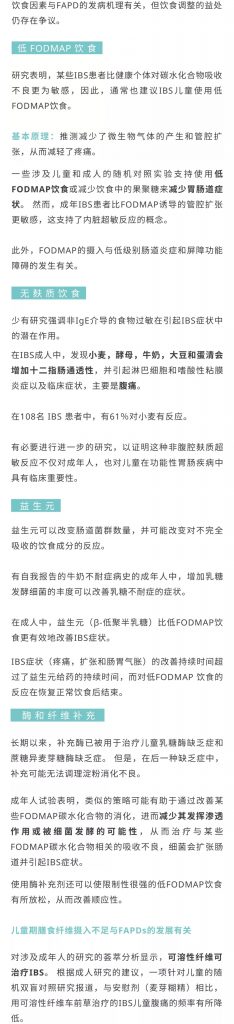

益 生 菌
多项研究检查了益生菌治疗FAPD的功效(大多成年IBS患者)。这些研究表明,益生菌或特定菌特定组合可能是有效的,但研究有局限性,如样品量,致盲性,所用益生菌的差异以及不同的剂量,其作用仍不清楚。
在患有IBS的儿童中,两项研究发现鼠李糖乳杆菌GG可有效减轻腹痛症状,而一项研究则报告腹痛没有改善,但感觉到的腹胀有所改善。在不同的研究中,疼痛程度再次有所不同。
在一个多中心,IBS儿童中进行的交叉RCT研究中,VSL#3(八种益生菌菌株的混合物)在改善症状和改善生活质量方面比安慰剂更安全,更有效。
心 理 干 预
心理干预迄今为止,诸如CBT和催眠治疗等心理干预已被证明是管理FAPD的最成功干预措施,并主张将其普遍纳入管理策略。
认知行为疗法(CBT)
CBT是治疗IBS的研究最多的心理疗法,其目的是改变认知,情绪和行为,这些不良情绪行为等都可能加剧或维持IBS症状。
在成人和儿童中的研究表明,与教育和其他控制干预措施相比,CBT在改善疼痛和参与社交生活的能力以及减轻焦虑或抑郁症状方面是有效的。
十二项随机对照试验涉及990名IBS儿童(7-18岁),显示出CBT对生活质量,学校表现和社会参与产生了长期的,持久的有益影响。CBT可以作为面对面的治疗提供,也可以通过互联网面向儿童或通过电话面向父母。
已报道,CBT在改善肠易激综合征儿童的疼痛和残疾方面具有有效性。患有家族性帕金森病的儿童的社区康复治疗主要集中在学习应对症状和减少残疾上,这些治疗应该是综合护理方法的理想组成部分。
催 眠 疗 法
在治疗师的指导下,患者会进入催眠状态,以响应改变主观体验,感知,情感,思想或行为的建议。
在成年人中,催眠疗法已被证明可导致结肠运动改变,改善内脏超敏性并减少长期持续存在的心理因素,例如躯体化和心理压力。
然而,在IBS患儿中,尽管接受了标准疗法的儿童的疼痛评分和躯体化评分均较低,但在催眠治疗后并未发现超敏反应降低(通过实验测试)。
IBS或FAP-NOS(n = 412;6-18岁)儿童的5个随机对照试验,无论是单独治疗还是在家中通过CD进行催眠治疗,均产生了长期有益影响。
在1年和5年的随访中,接受催眠治疗的患者中分别有85%和68%已没有症状,而对照组中分别只有25%和20%的患者缓解
瑜 珈 疗 法
瑜伽练习已被证明可以改善应激诱导的副交感神经系统活性不足。三个随机对照试验,包括127名IBS儿童(7-18岁),瑜伽疗法在减少腹痛方面具有积极作用。
但是,一项荷兰研究表明,在1年的随访中,瑜伽干预并没有比不包括CBT的标准治疗更有效。由于学习方法的重大缺陷,尚不能提出将瑜伽作为FAPD儿童的常规干预措施的建议。
神 经 刺 激
多项研究表明,脊髓和大脑的电刺激在调节疼痛途径中的功效,能够减少脊髓和中央杏仁核中50%以上的神经元放电,从而减轻内脏疼痛。
一项研究表明,经皮神经电刺激(PENFS)可以调节杏仁核和脊髓神经元的反应特性,并显着降低大鼠内脏超敏反应的发展。
随后,同一组受试者在115名FAPD的青少年(11至18岁)的随机对照试验中显示,具有主动装置的PENFS可以改善健康状况,并显着减轻疼痛和残疾 与假刺激组。
此外,PENFS的有益作用在2个月的随访期间得以维持。尽管有些耳部不适,但未报告严重的不良反应。
补 充 和 替 代 医 学
补充和替代医学包括不同的方法,从针灸和阿育吠陀医学到脊椎指压疗法、整骨疗法、顺势疗法、精神治疗、按摩和冥想等身心技术。大约40%的澳大利亚和荷兰诊断为糖尿病肾病的儿童使用其中某些替代疗法,其中草药治疗是最常见的(46%)。
许多补充疗法被公众认为是“自然的”,比现代医学的医疗设备更安全、更温和。FAPDs儿童对对抗疗法药物相关可能产生不良反应的恐惧,常规治疗没太大效果,让父母希望寻求补充和替代治疗。
然而,到目前为止,评估草药疗法、针灸、顺势疗法、身心疗法或肌肉骨骼操作(如整骨疗法和脊椎指压疗法)对患有家族性帕金森病的儿童的效果的随机对照试验尚不可用。
由于糖尿病周围神经病变的自发缓解率很高(30-70%),采取逐步的管理方法是明智的;必要时,教育、识别和改变压力因素和饮食干预可能是第一步。当症状持续或再次出现时,下一步可能是开始一种心理治疗,如认知行为疗法和催眠疗法,或PENFS。
药 物 疗 法
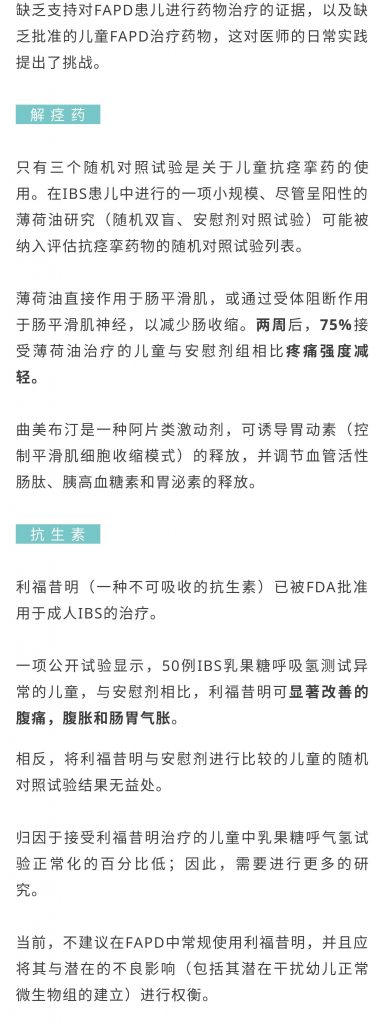


胃肠症状的严重程度和发生频率对不同患者的功能状态有不同的影响。患者报告的健康相关生活质量(HRQOL)测量应该有助于深入了解FAPDs对儿童和青少年功能状态的不同影响,包括身体、情感、行为、社会和认知方面。
评估症状和HRQOL影响的患者报告结果已成为成人临床状态和治疗结果的公认指标。但在儿童环境中,自我报告的HRQOL措施在仪器开发和临床应用中遇到了挑战,部分原因是担心儿童能否可靠地自我报告与健康相关的信息。
量化个体胃肠道症状对于开发以患者为中心和针对症状的干预措施很重要,这可以改善整体HRQOL。例如,一项针对259名患有功能性便秘,功能性腹痛或IBS的儿科患者的多中心研究发现,胃肠道症状最能预测整体受损。
FAPD在儿童时期很常见,FAPD患病率和/或复杂性可能会增加。因此,需要有来自所有地理区域以及世界各地精心设计的流行病学研究,才能真正了解问题的性质和规模。
特别重要的是,我们目前对导致儿童FAPD发病机理的潜在因素的了解,需要使用来自FAPD患儿的组织样本来解决免疫功能障碍和神经功能障碍的基础和转化科学研究。如上所述,早期的影响,即在复杂的肠脑轴各要素发展的关键阶段发生的事件,通常是辱骂或创伤(心理或医学方面的事件),使易感人群容易患上FAPD。
异常改变肠道菌群的因素可能会改变肠神经系统的结构或功能完整性,进而改变其与中枢神经系统的复杂且平衡的相互作用。结果可能是胃肠道重新调整为过敏状态,而大脑则重新编程为过度警觉状态。
当然,其他遗传因素,社会因素和生理变化,例如在青春期或青春期发生的那些,也可能促进症状发展。
现代工具越来越多地与焦虑和压力相关联,也可能会对FAPD产生重大影响。
总体而言,在过去十年中,儿童家庭保护方案取得了相当大的进展。对所有影响因素,及其与触发FAPD最终发展有关时机的更深入了解,可能带来更合适的预防或治疗策略。
【附录】
功能性腹痛疾病的罗马IV诊断标准
肠易激综合征
该标准必须满足至少2个月,并包括以下所有:
• 每月至少有4天腹痛伴有排便和/或排便次数的改变和/或大便外观的改变
• 腹痛不能随着便秘的解决而消失(疼痛消除的儿童患有功能性便秘,非肠易激综合征)
• 经过适当评估,症状不能完全由另一种疾病解释
功能性消化不良
诊断前必须至少满足2个月的标准,并且必须包括以下一种或多种症状,每月至少4天:
• 餐后饱腹感
• 早期饱腹感
• 与排便无关的上腹部疼痛或灼热感
• 经过适当评估,这种症状不能完全由另一种医学状况来解释
腹型偏头痛
必须在诊断前至少6个月内达到标准,并包括以下所有至少发生两次的情况:
• 持续1小时或更长时间的剧烈、急性脐周、中线或弥漫性腹痛的阵发性发作(应为最严重和最痛苦的症状)
• 发作间隔数周至数月;疼痛使人丧失能力并干扰正常活动;个体患者的定型模式和症状
• 疼痛与以下两种或两种以上症状相关:厌食、恶心、呕吐、头痛、畏光或苍白
• 经适当评估,症状不能完全由另一种医学状况解释,
功能性腹痛
未另行规定标准必须在诊断前至少2个月完成,每月至少四次,包括以下所有内容:
• 并非仅在生理事件(例如,饮食和月经)期间发生的偶发性或持续性腹痛;肠易激综合征、功能性消化不良或腹部偏头痛的标准不足
• 经过适当评估,腹痛不能由其他医疗状况完全解释
相关阅读:
主要参考文献:
Sjölund, J. et al. Prevalence and progression of recurrent abdominal pain, from early childhood to adolescence. Clin. Gastroenterol. Hepatol. 2020
Paediatric functional abdominal pain disorders.[J] .Nat Rev Dis Primers, 2020, 6: 88.
Rutten, J. M. T . M., Korterink, J. J., Venmans, L. M. A. J., Benninga, M. A. & T abbers, M. M. Nonpharmacologic treatment of functional abdominal pain disorders: a systematic review. Pediatrics 135, 522–535
Masuy, I., Van Oudenhove, L. & T ack, J. Review article: treatment options for functional dyspepsia. Aliment. Pharmacol. Ther. 49, 1 134–1 172 (2019)
Russell, A. C., Stone, A. L. & Walker, L. S. Nausea in children with functional abdominal pain predicts poor health outcomes in young adulthood. Clin. Gastroenterol. Hepatol. 15, 706–71 1 (2017)
Maragkoudaki, M. et al. Lactobacillus reuteri DSM 17938 and a placebo both significantly reduced symptoms in children with functional abdominal pain. Acta Paediatr. 106, 1857–1862 (2017).