-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
心血管疾病(CVD)已成为主要的健康问题,是导致发病率和死亡率高的主要原因,2型糖尿病(T2DM)患者发生CVD和重大心血管不良事件(MACE:心衰梗死、中风、死亡)风险更高,且预后较差。传统的CVD风险指标以及T2DM的血糖控制都不能很好地预测T2DM患者发生CVD的风险。

肠道菌群最近被认为是一种新型的内分泌器官,它通过产生生物活性代谢产物,在调节宿主的心脏代谢和肾脏功能中发挥关键作用。
肠道并不是第一个被用来研究心血管疾病病理生理学的器官。它不仅是处理食物消化吸收的器官,而且是体内最大的具有免疫活性的器官。
最近的研究表明,肠道菌群会产生并释放许多代谢产物和毒素,其中一些代谢产物和毒素会吸收到宿主的体循环中,作为微生物影响宿主的媒介。
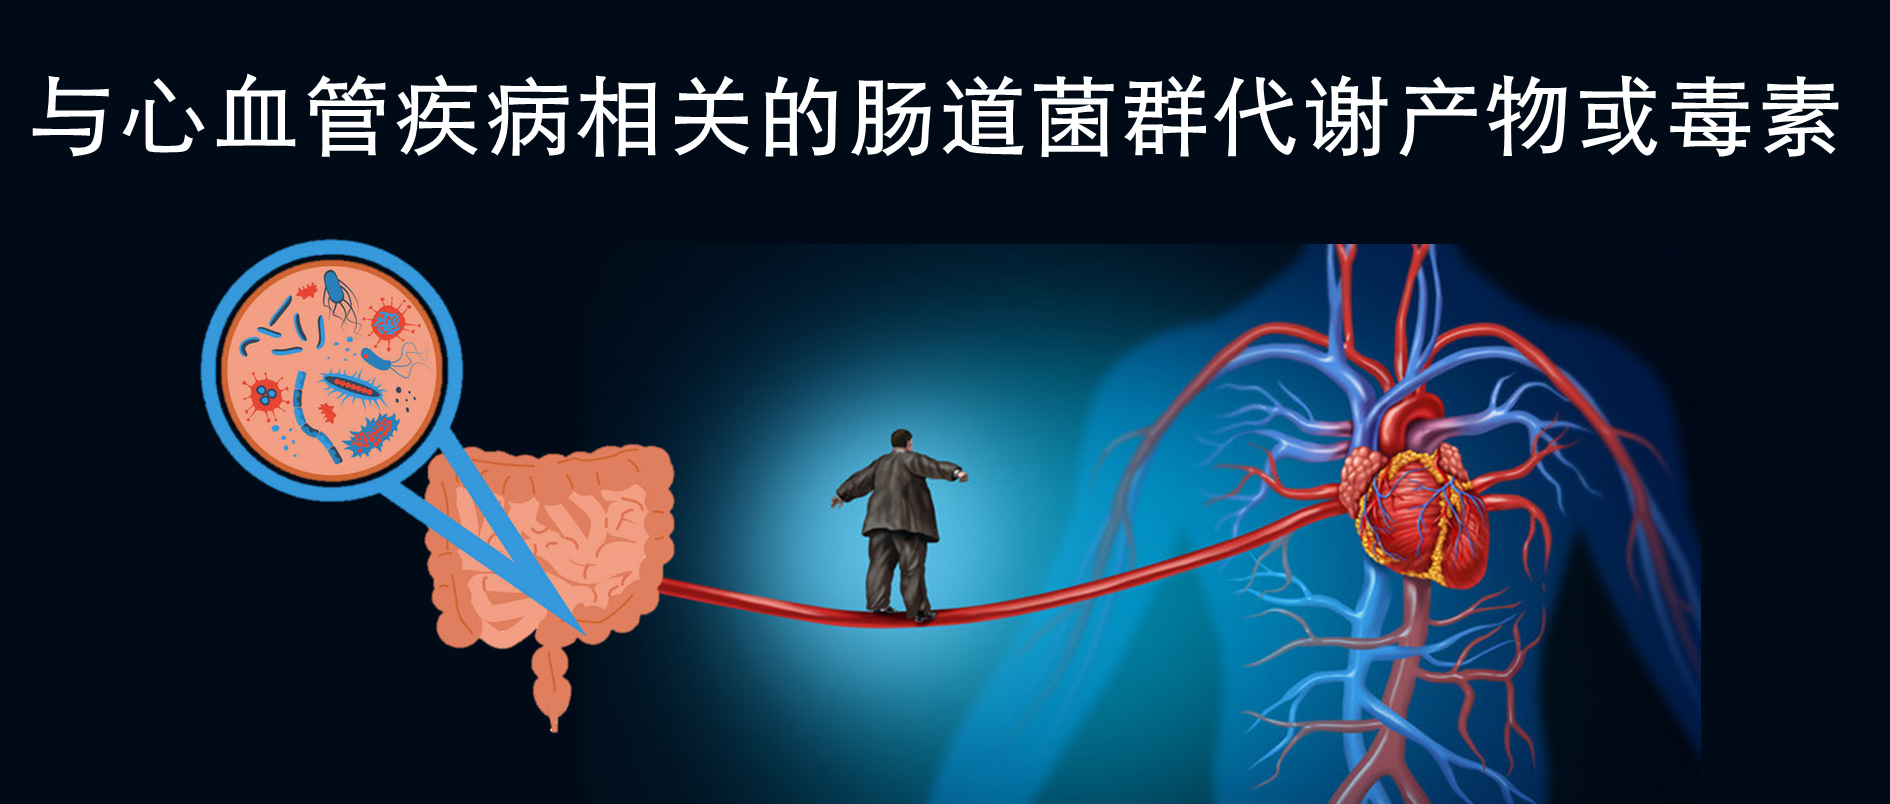
我们整理汇总了这篇综述调查来自数项临床和实验研究的证据,这些证据表明肠道微生物群来源的毒素与CVD之间存在关联,包括脂多糖LPS、氧化三甲胺TMAO和苯乙酰谷氨酰胺PAGln。目前已经正在进行一些临床研究,旨在探索降低这些毒素水平以抑制心血管事件的有效性。
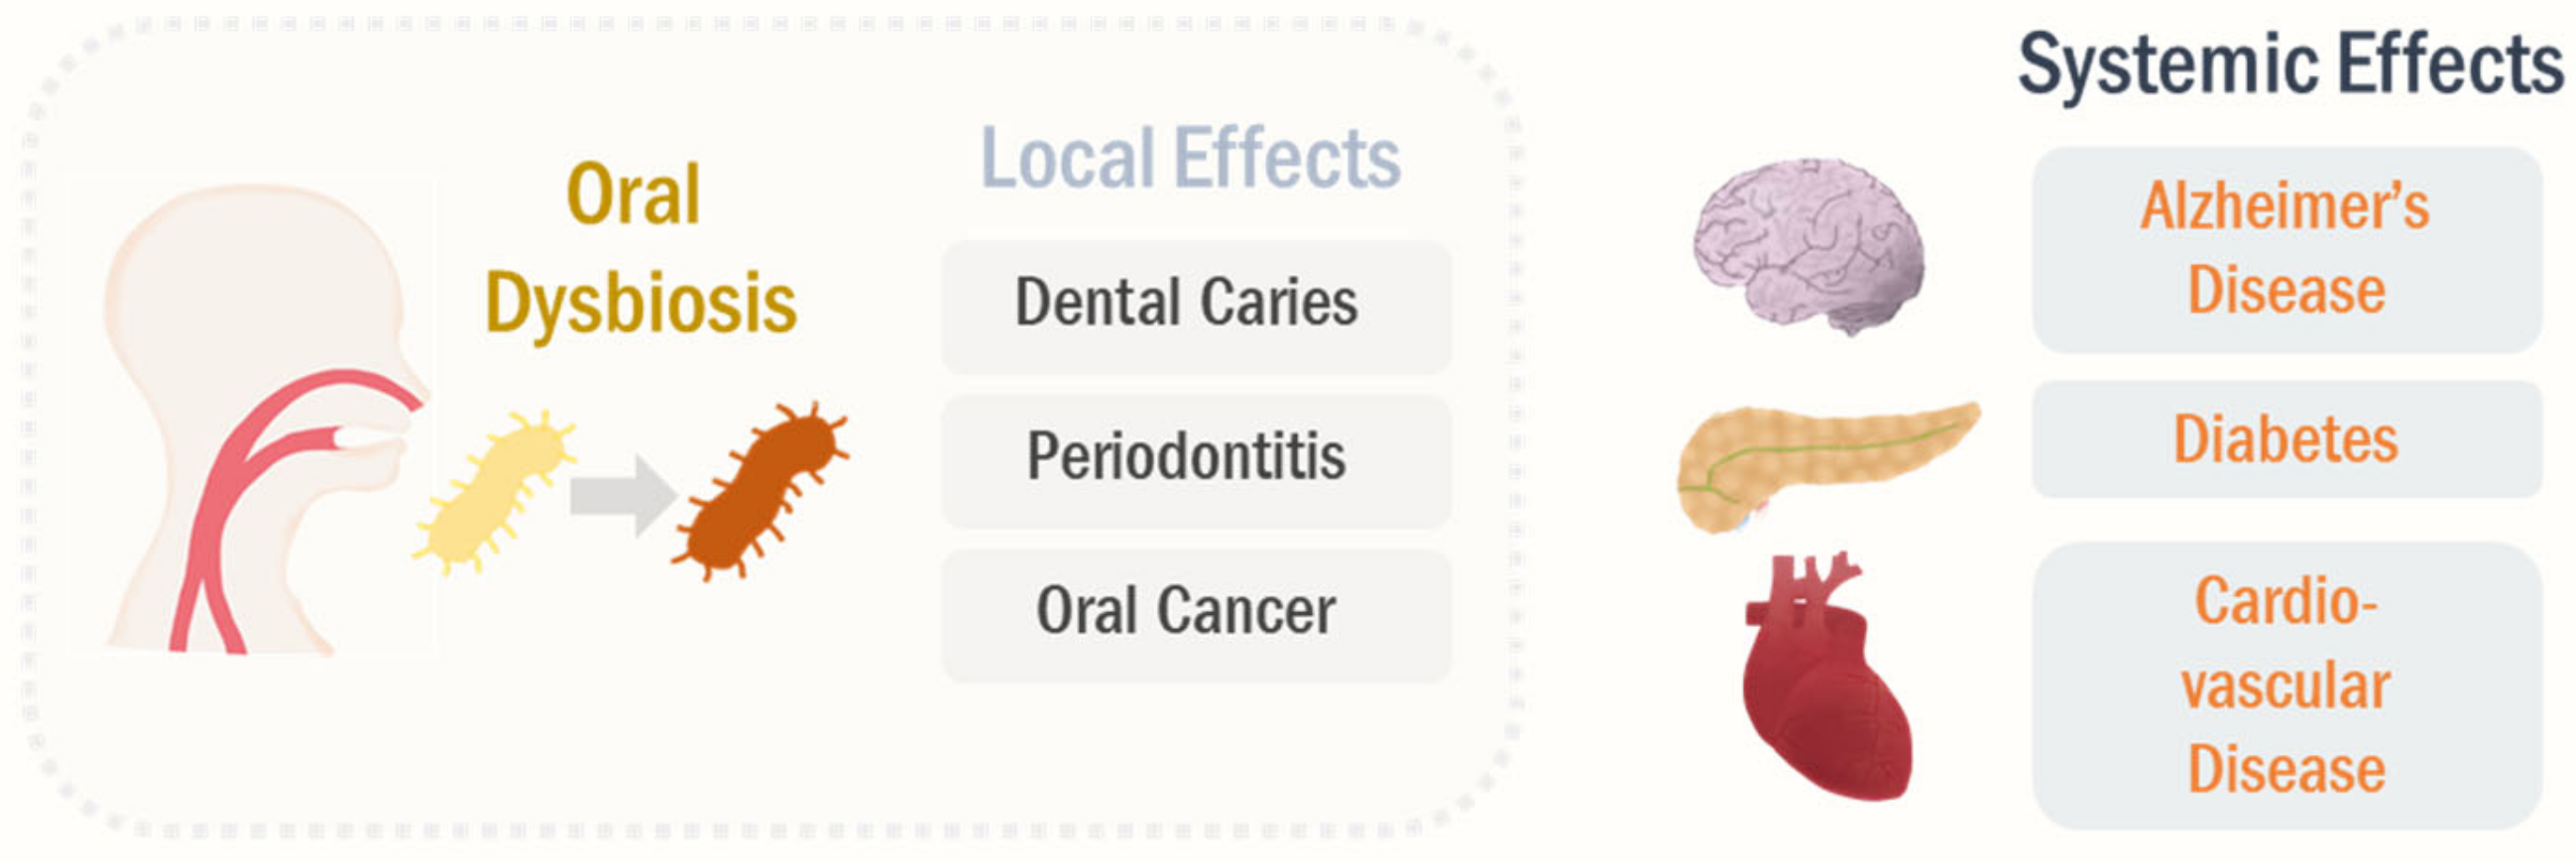
了解这些菌群相关代谢物是如何产生并如何影响心血管疾病有助于我们了解可能的风险和找到更好的生活方式来预防CVD。
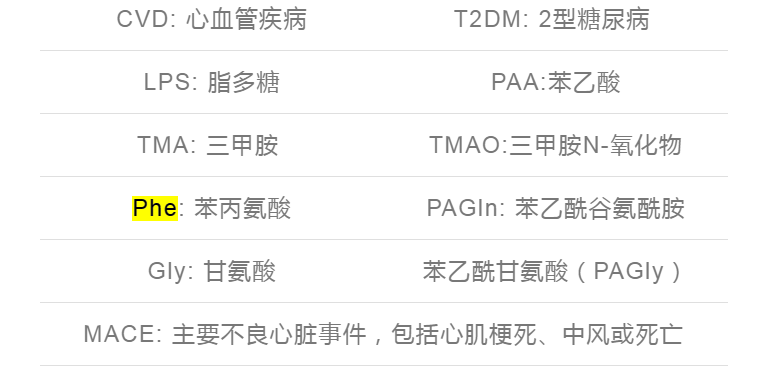
缩略词:

LPS的结构和特点
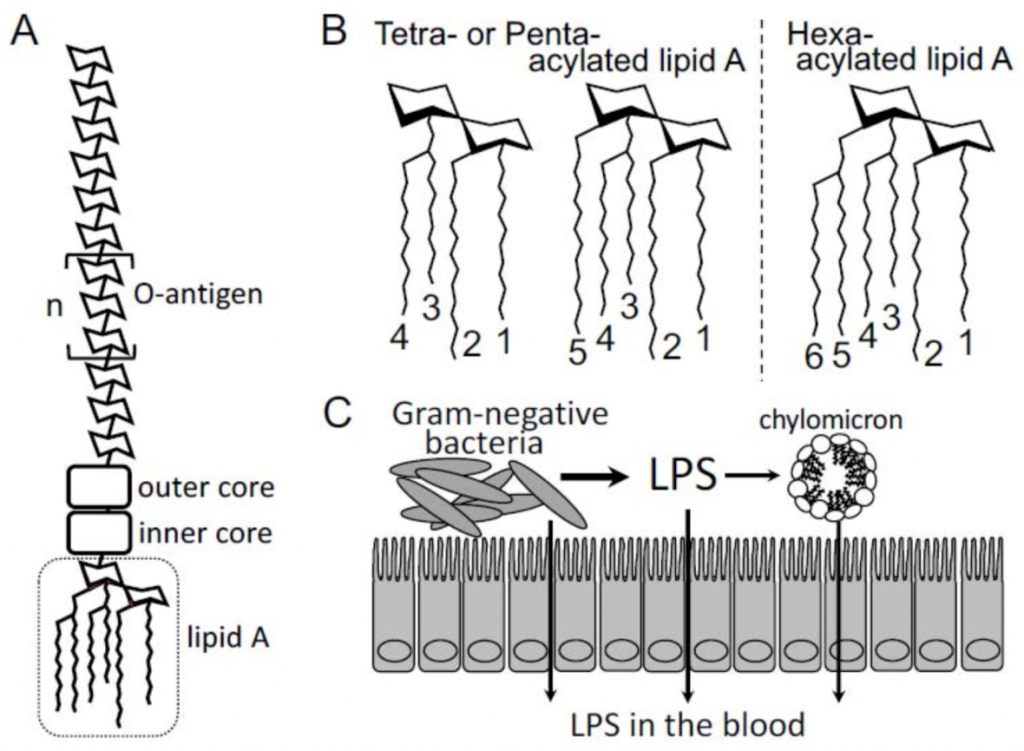
LPS,也称为内毒素,是革兰氏阴性细菌外膜的组成部分,主要存在于人体的肠道和口腔中。LPS的基本化学结构由亲水区和糖部分结合到疏水区组成,称为脂质A(下图A)。
LPS的亲水区域由内核和外部核以及O抗原(物种特异性重复寡糖亚基)组成,该区域对LPS的促炎活性影响最小(下图A)。
脂多糖(LPS)和脂质A的结构
Yamashita T,et al., Toxins,2021
疏水区脂质A在各种革兰氏阴性细菌中在结构上是保守的,由磷酸化的二葡萄糖胺主链组成,该主链具有4至7条相连的酰基链(上图B)。脂质A是Toll样受体4(TLR4)的配体和LPS的最关键“毒素”部分,它激活先天免疫系统,包括单核细胞和巨噬细胞,并引起宿主的炎症反应。
宿主血液中的 LPS 是从哪里来的?
——从肠道菌群中来
LPS是革兰氏阴性细菌外膜的主要成分,因此肠道微生物群可能是血液LPS的主要来源。人类胃肠道中存在数百万亿细菌,实际上,粪便LPS水平通常反映了肠道菌群衍生的LPS量,这个量因人的菌群构成和总量而异。
此外肠道通透性的提高会增强肠道菌群来源的LPS从肠道到血液的渗透。高脂饮食会增加肠道的通透性。
而Akkermansia菌可以加强肠道的紧密连接并防止代谢性内毒素血症,此外肠道菌群产生的短链脂肪酸可以保护肠屏障功能。
——从食物中来
除了肠道菌群以外,食物也是LPS的天然来源,因为食物和水总是含有少量LPS。饮食模式反映了血液中LPS的水平。
具体来说,选择健康的饮食食物(包括鱼,新鲜蔬菜和水果)可能会带来积极的健康结果,因为它们有助于减少内毒素血症。
CVD与几种传统的危险因素有关,例如高血压,血脂异常,糖尿病,吸烟和肥胖。
炎性过程已知在心血管病的发展中扮演至关重要的角色,而LPS是一种众所周知的炎症物质。LPS被认为是包括CVDs在内的炎性疾病的一种毒素,并参与CVDs发病和进展的病理生理过程。
由于LPS刺激TLR4诱导释放关键的促炎性细胞因子,而这些因子是激活有效免疫反应所必需的,大量的流行病学证据表明,内毒素血症的血液中LPS处于高水平,是动脉粥样硬化的重要危险因素,并且是LPS与动脉粥样硬化疾病之间联系的纽带。
不同的菌群,其LPS结构不同
虽然肠道菌群可以是粪便LPS的主要来源,但不同的菌群构成其LPS的炎症效应是不同的。LPS的脂质A部分的结构在不同菌群之间有所不同(上一小节图B)。这些结构差异可能是决定LPS活性的主要因素。
例如,已知拟杆菌属具有四酰基和五酰基酰化的脂质A部分,而大肠杆菌具有六酰化类脂A部分。通常,四和五酰化脂质A部分相比六酰化类脂A部分会减少TLR4反应。这表明如拟杆菌的LPS其诱导的促炎性细胞因子生成要远低于大肠杆菌的LPS。
因此肠道细菌组成和这些细菌所拥有的脂质A部分的类型可能是影响肠道微生物LPS与CVD之间关联的重要因素。
越来越多的证据表明,全身性内毒素血症和肠道菌群衍生LPS参与心血管病和许多其它流行疾病的发作和进展,如炎性肠疾病,肥胖和相关代谢性疾病,和非酒精性脂肪性肝炎。
2011年,Hazen博士和他的同事使用代谢组学方法在动脉粥样硬化研究中取得了显著发现,并揭示了肠道衍生的代谢产物TMAO是心血管疾病大型临床队列中心血管事件的独立预测因子。
TMAO是心血管疾病的危险因素
TMAO在伴有冠状动脉疾病、血栓形成、慢性肾病和心力衰竭的CVD患者中升高,并与不良心血管事件和全因死亡率相关。
据报道,TMAO水平升高与慢性肾病患者的肾功能程度和全身炎症增加密切相关,而TMAO可作为该组严重慢性肾病患者死亡率的独立预测因子。可以合理地得出结论,TMAO是肠道菌群来源的尿毒症或心血管毒素,可导致全身性炎症。
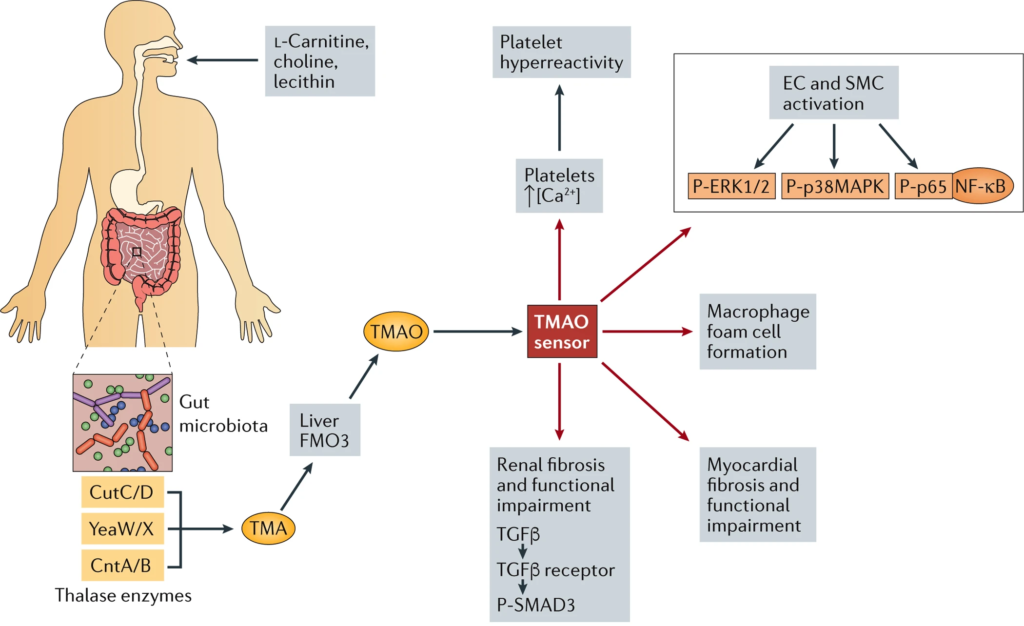
TMAO的产生
Brown J M, et al., Nature Reviews Microbiology, 2018
磷脂酰胆碱是一种在食品中发现的饮食成分,例如奶酪,蛋黄,肉和贝类,在肠道中被转化为胆碱,随后利用肠道微生物酶TMA裂解酶代谢为三甲胺(TMA)。TMA从肠道吸收进入门脉循环,然后通过肝脏中含黄素的单加氧酶(宿主酶)转化为TMAO 。
他们还证明,饮食中的左旋肉碱是红肉中的一种丰富营养物质,含有类似于胆碱的三甲胺结构,会促进血浆TMAO水平的升高并加速动脉粥样硬化。
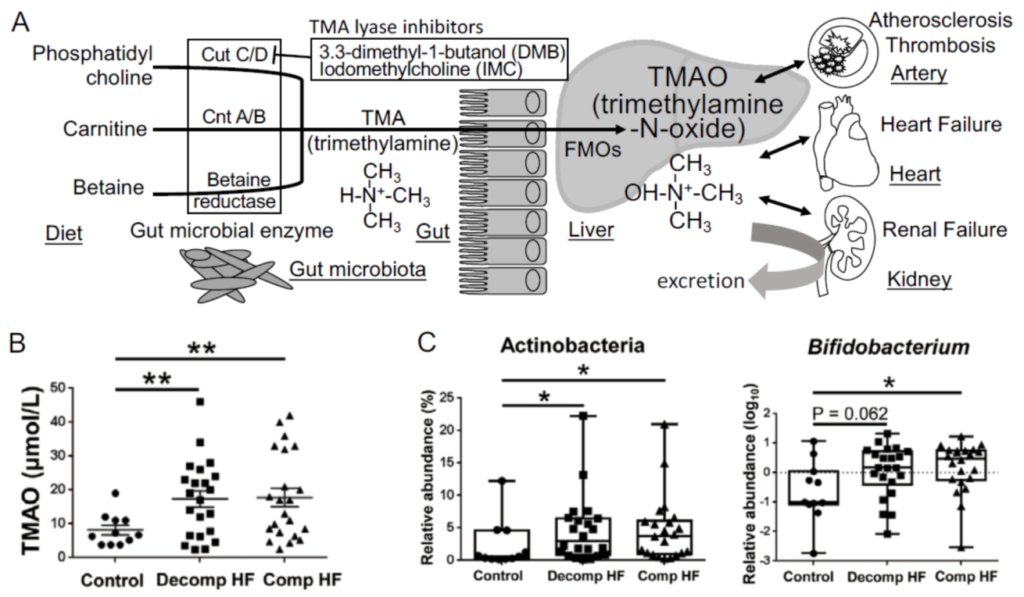
肠道微生物衍生的TMAO代谢
Yamashita T,et al., Toxins,2021
与TMA产生有关的三个关键的微生物功能基因簇是胆碱TMA裂解酶(cutC)及其激活物(cutD)(cutC/D),一种糖基自由基酶和一种糖基自由基激活蛋白;肉碱加氧酶A/B(cntA/B),是一种由两部分组成的Riesketype加氧酶/还原酶复合物;甜菜碱还原酶途径(上图A)。
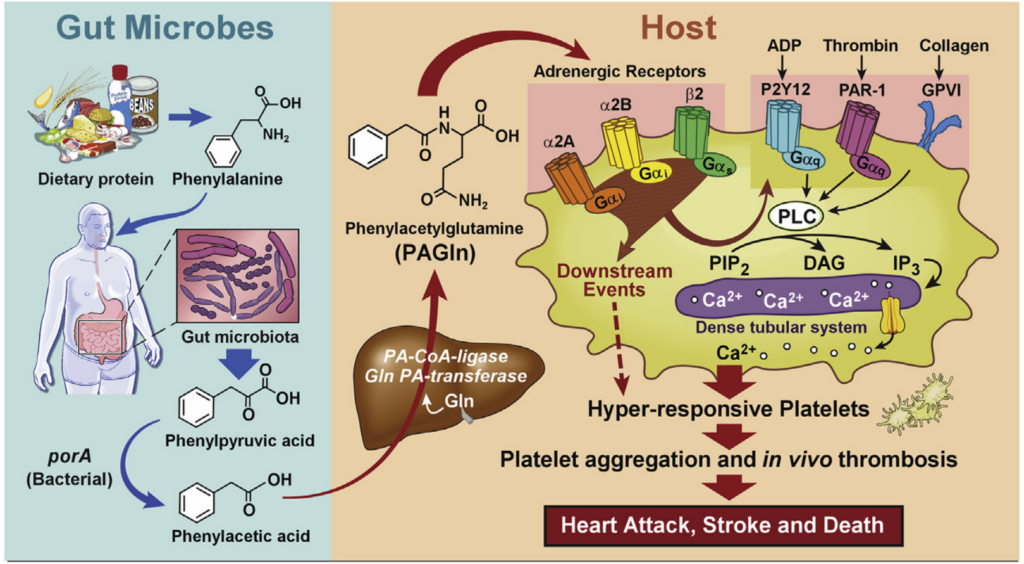
2020年Hazen团队通过代谢组学分析发现苯丙氨酸(Phe)与T2DM患者发生CVD风险升高有关,该物质被肠道微生物代谢生成苯乙酰谷氨酰胺(PAGln)。
对人群队列的代谢物检测发现,高PAGln水平与MACE高风险显著相关,较高的PAGln水平仍是MACE风险的独立预测因子。
肠道菌群影响PAGln水平
通过检测基线(Pre-Abx)、7天广谱复合抗生素处理(Abx)和3周清除期菌群重塑(Post-Abx)的血浆PAGln水平,发现PAGln水平受肠道微生物影响。
有研究表明,PAGln由苯乙酸(PAA)与谷氨酰胺(Gln)在肝酶的作用下形成,而PAA由苯丙氨酸(Phe)经菌群代谢产生。此外,PAA也可与甘氨酸(Gly)结合形成苯乙酰甘氨酸(PAGly)。
因此,在人类和小鼠体内,PAGln和PAGly都是通过肠道微生物群将饮食中的苯丙氨酸转化为PAA的元生物途径产生的,此时宿主与Gln(人类首选)或Gly(啮齿类动物首选)发生结合反应,分别产生PAGln和PAGly

Nemetet al. Cell , 2020
PAGln与血小板相互作用
根据人PAGln水平与血栓事件正相关性,提示PAGln可影响血小板功能和血管基质相互作用。研究结果显示,PAGln加速了胶原依赖性血小板粘附和扩散速度,并呈现剂量依赖性,表明PAGln可能与血小板直接相互作用,促进胞质内Ca2+浓度([Ca2+]i)呈现依赖性升高,并进行了相关验证。此外,在PAGly实验中也观察到类似结果。
因此,肠道菌群相关代谢产物PAGln和PAGly显著影响血小板功能,增强血小板与胶原基质的粘附,以及血小板刺激依赖性[Ca2+]i升高和对激动剂的聚集反应。
降低血栓形成
有研究报道Phe主要由生孢梭菌(Clostridium sporogenes)代谢为PAA(氧化途径)和苯丙酸(PPA)(还原途径),随后分别与Gln或Gly缩合形成PAGln或PAGly。其中参与反应的酶主要由porA或fldH基因编码。基因porA主要影响PAA产生,而fldH主要调节PPA产生,且敲除fldH会增加PAA水平继而影响PAGly水平从而显著降低血栓形成。
PAGln通过G蛋白偶联受体和ADRs介导细胞反应
Nemetet al. Cell , 2020
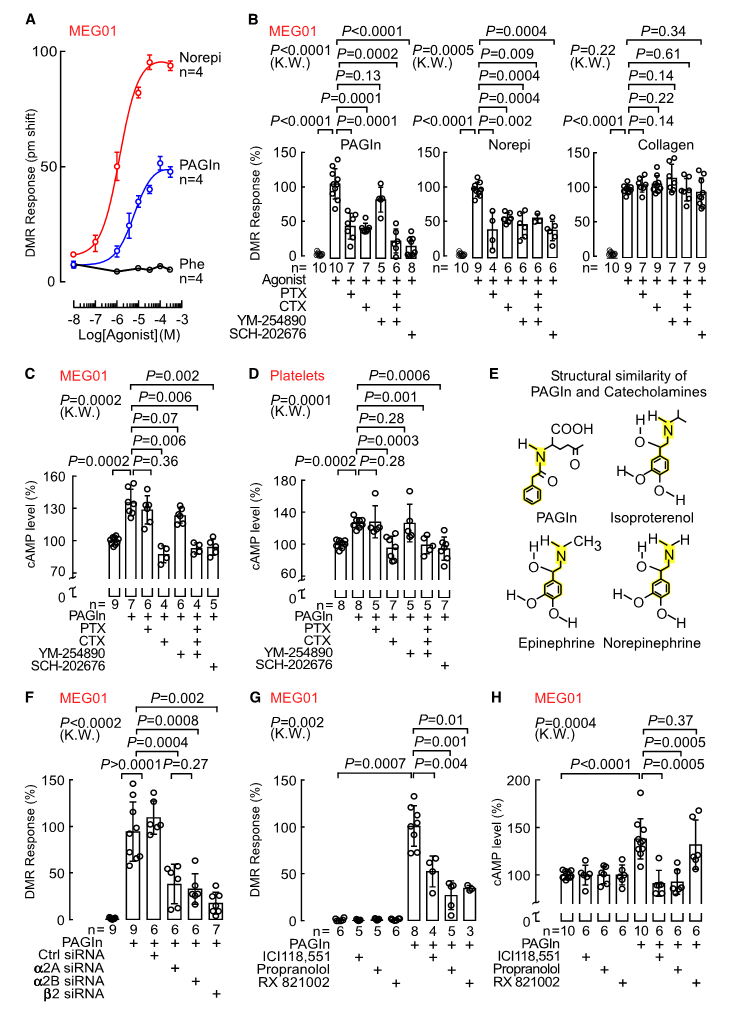
研究人员发现PAGln与儿茶酚胺结构相似(上图E),暗示PAGln通过肾上腺素能受体(ADRs)发挥作用。遗传和药理学方法的功能丧失和功能获得研究证实,PAGln可通过G蛋白偶联受体(包括α2A,α2B和β2-ADRs)介导细胞反应。而β受体阻滞剂(卡维地洛)可显著降低PAGln诱导的高血栓风险。
微生物代谢产物可以调节宿主的生理和病理生理过程,这一发现开启了多种可能性,特别是证明了许多微生物途径可以作为抑制心血管病的治疗靶点。
LPS和TMAO可用于开发有效的治疗策略,然而目前还不能证明这些毒素水平是如何在宿主体内被确定和调节的。因此,需要进一步研究阐明肠道微生物源毒素与心血管疾病之间的因果关系,进一步探索肠道微生物及其代谢产物,包括毒素之间的关系,以确定心血管疾病治疗干预的最佳方法及患者的预后。
相关阅读:
主要参考文献:
Brown J M, Hazen S L. Microbial modulation of cardiovascular disease[J]. Nature Reviews Microbiology, 2018, 16(3): 171.
Yoshida, N.; Yamashita, T.; Kishino, S.; Watanabe, H.; Sasaki, K.; Sasaki, D.; Tabata, T.; Sugiyama, Y.; Kitamura, N.; Saito, Y.; et al. A possible beneficial effect of Bacteroides on faecal lipopolysaccharide activity and cardiovascular diseases. Sci. Rep. 2020, 10, 13009
Nemet et al. A Cardiovascular Disease-Linked Gut Microbial Metabolite Acts via Adrenergic Receptors. 2020, Cell 180, 862–877.
Yamashita T, Yoshida N, Emoto T, et al. Two Gut Microbiota-Derived Toxins Are Closely Associated with Cardiovascular Diseases: A Review[J]. Toxins, 2021, 13(5): 297.
Cui, X.; Ye, L.; Li, J.; Jin, L.; Wang, W.; Li, S.; Bao, M.; Wu, S.; Li, L.; Geng, B.; et al. Metagenomic and metabolomic analyses unveil dysbiosis of gut microbiota in chronic heart failure patients. Sci. Rep. 2018, 8, 635
Guo, C.J., Allen, B.M., Hiam, K.J., Dodd, D., Van Treuren, W., Higginbottom, S., Nagashima, K., Fischer, C.R., Sonnenburg, J.L., Spitzer, M.H., and Fisch-bach, M.A. (2019). Depletion of microbiome-derived molecules in the host using Clostridium genetics. Science 366, eaav1282
谷禾健康

导语
微生物在在地球上无处不在,适应了几乎所有可用的生态栖息。 微生物在不同物种和个体之间差异性很大,存在着广泛的微生物多样性。
野生动物之所以能够耐受病原菌的感染和有毒食物的威胁以及抵御多种疾病,可能与其体内或体表生存的微生物密切关联。然而,与已被广泛研究的人类微生物群相比,野生动物的微生物群受到的关注较少。
当宿主有着共同的饮食或共同祖先,尤其是哺乳动物,通常肠道菌群构成也更为相似,不过这种相关性在鱼类、两栖类、鸟类和非脊椎动物中较弱。在许多情况下,肠道微生物都参与宿主的关键生理过程,包括代谢特殊的饮食化合物。
近日,以色列魏茨曼科学研究院Eran Segal团队采用一致的方法从全球四大洲采集了406份动物粪便样品,包括121份养殖样品和285份野生样品。共涉及184个动物物种,包括哺乳类、禽类、两栖类、硬骨鱼类等的物种。这些物种在分类单元、觅食/取食行为、地理分布、性状等方面具有较高的多样性。
使用宏基因组学来分析这180多个物种的肠道菌群,使用从头基因组组装,构建并在功能上注释了5000多个基因组的数据库,其中包括1209种细菌,但是其中75%未知。
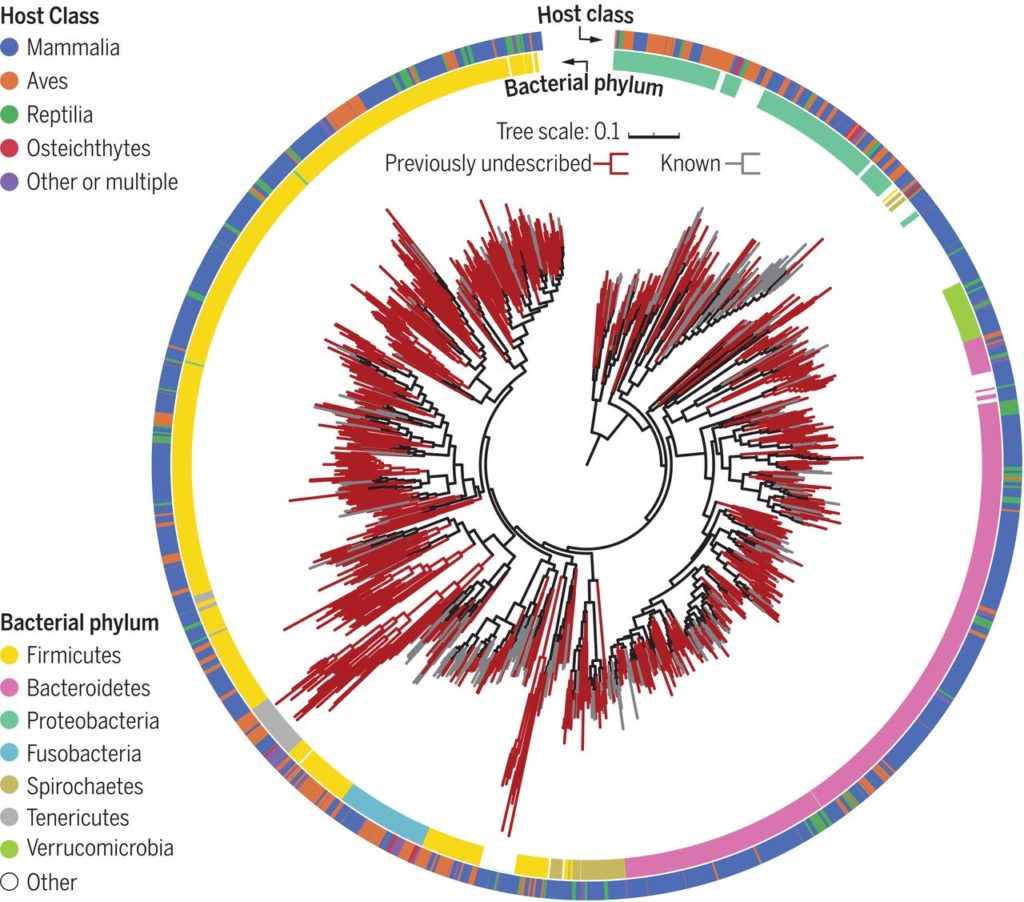
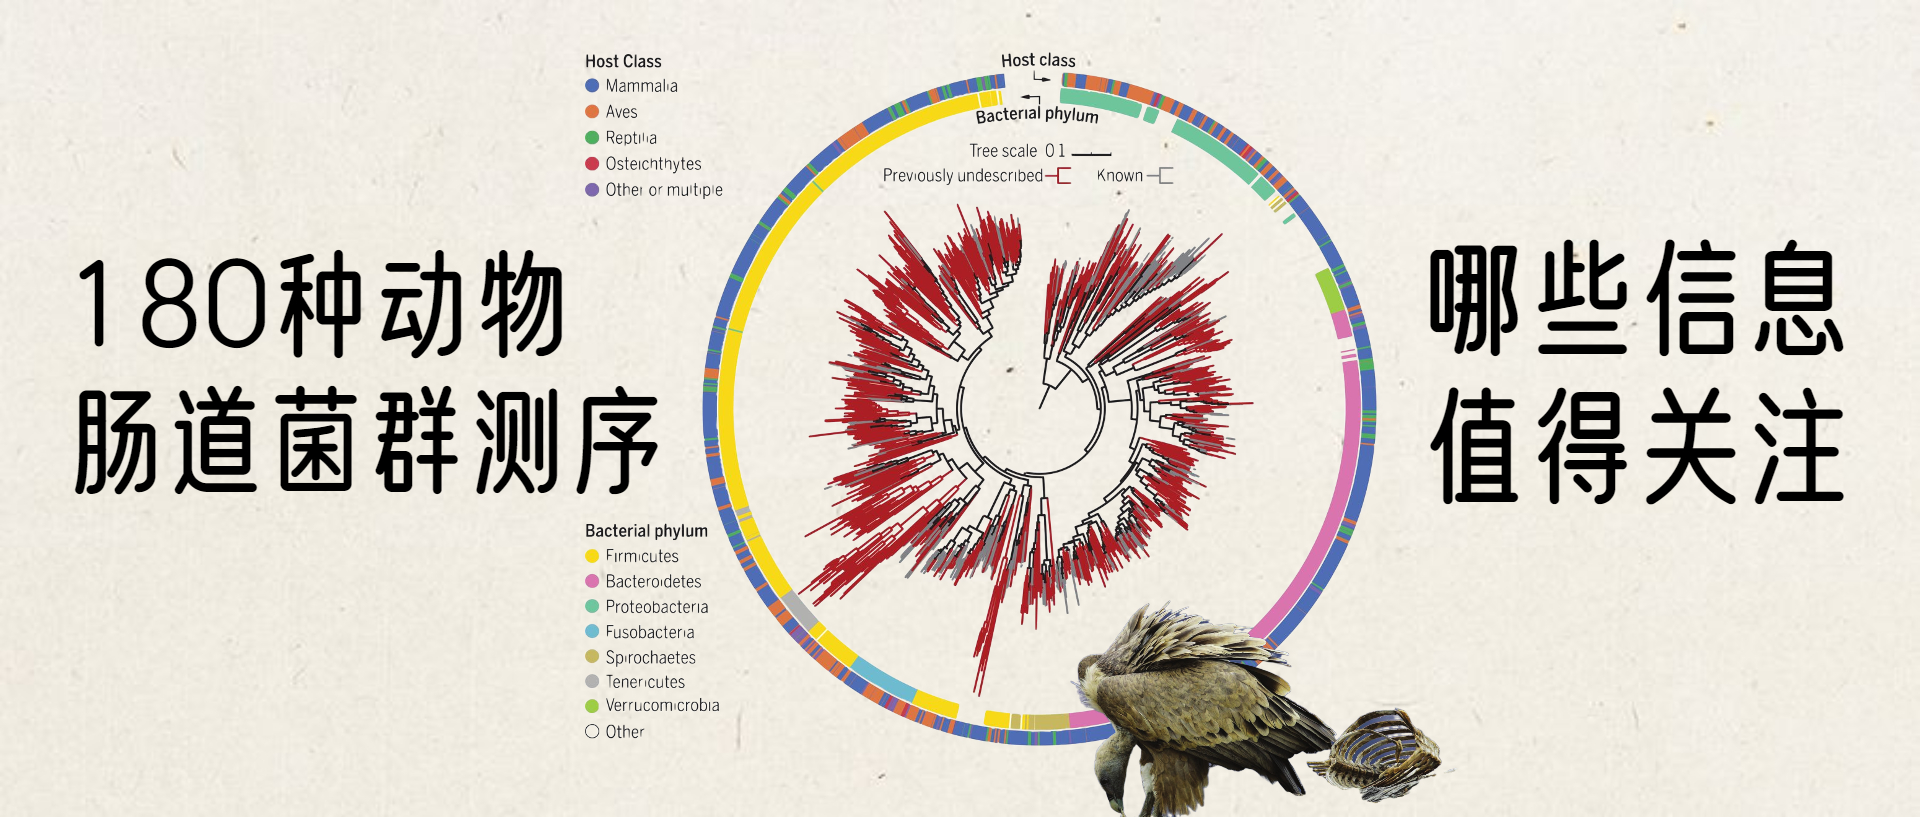
在这项研究中组装的1209个基因组的最大似然比的系统发育树。
内有色环和外有色环分别表示细菌门和宿主类别。先前未描述的基因组进化枝为深红色。
一,坚持野外采样。野外采样,尤其对于动物采样存在很多挑战,但是证据表明圈养动物会改变微生物组,而且,过往大量有关哺乳动物的研究大部分来来自于是圈养动物,包括大小鼠。这次大规模全球野外采样,可以扩大和了解动物宿主栖息微生物的机会。
二,要获得广泛的野生动物代表性,需要在全球不同的生态环境采样,并从具有不同特征和喂养方式的多种动物中取样。此外,该研究为每个物种手工制定了特质,包括饮食适应性,活动时间和社会结构,使我们能够系统地研究微生物群组成与宿主表型之间的关系。
三,为未知物种的大规模注释细菌基因组数据库,并确定了与这些动物的性状和分类相关的多种微生物模式,并强调了其潜力作为发现新的工业酶和治疗剂的主要未开发资源。
微生物的组成,多样性和功能含量与动物分类,饮食,活动,社会结构和寿命相关。动物微生物群系是生物功能的丰富来源,可能会对生物技术产生影响,包括抗生素,工业酶和免疫调节剂。
此外,野外动物表现出适应性,例如安全食用腐烂,感染病原体的肉类和有毒植物,可以产生强效毒素、生物发光以及各种疾病和微生物病原体具有特异性免疫力、再生能力并且在某些物种中具有极长的寿命。这些适应性中的某些,例如毒素产生和生物发光至少部分是由生活在动物体内/上的微生物共生体赋予的。该研究构建和功能注释从自然栖息地的野生动物中提取的微生物群的综合数据库可以对动物性状与其微生物群之间联系的进行全面了解。
例如,为了证明在动物微生物群中可以发现新的细菌功能,作者在实验中验证了细菌毒素——食用腐肉的欧亚兀鹫(Gyps fulvus)的MAG中发现的代谢蛋白酶。这些蛋白酶可用作抗菌化合物,具有抗菌活性潜在的应用包括对抗人类食物中毒。
欧亚兀鹫(学名:Gyps fulvus):体长95-105厘米,尾长24-29 厘米,翼展240-280厘米,体重6-11千克。是一种大型的褐色鹫。栖息在海拔高达2,500米的范围内。主要以山羊、鹿和瞪羚等野生动物,以及人类养殖的绵羊、山羊、牛和马为食。靠灵敏的嗅觉来找寻腐烂的动物尸体,并常常为抢一块肉而争个不停。而且习惯把头伸进动物尸体的腹腔内,啄食内脏和肌肉。分布范围非常广泛,遍布欧洲、中东和北非,也分布于印度、喜马拉雅山脉。在地中海沿岸国家最常见。
这项研究的最大贡献是其丰富的、系统生成的数据集。很容易想象,微生物保护和新出现的抗生素耐药性等不同领域的突破是由这些亚基因组的发现推动的。在欧亚兀鹫微生物群中发现的蛋白酶证明了从野生动物微生物群中进行生物勘探的原理,尽管尚不清楚该案例研究是否应被视为例外或预期的发现。

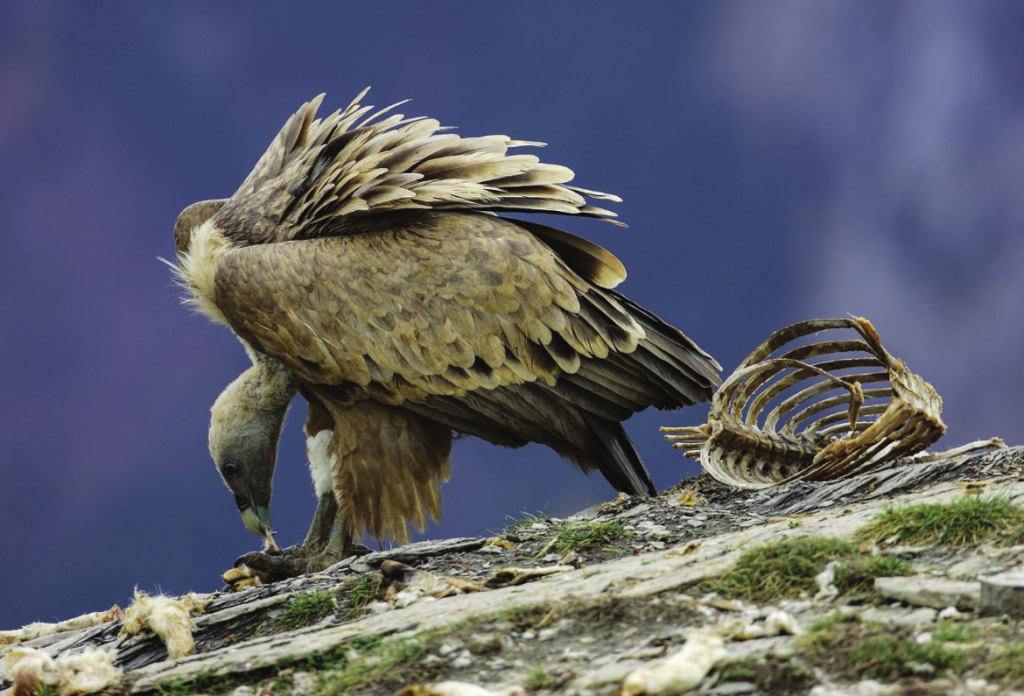
新发现的食腐肉的欧亚兀鹫(Gyps fulvus)的肠道细菌中的毒素代谢蛋白酶可能在抵抗食物中毒方面有应用。
这项研究仅仅触及了可以用这个数据集检验的假设的表面。未来方向包括:
01 微生物群如何帮助动物降解有毒的植物化学物质。
02 抵御食物中的病原体。
03 从多种食物来源中提取营养的问题。
四,丰富了许多未知物种的细菌门,并发现某些细菌进化枝相对于同一门中的其他细菌具有独特的功能特性。动物种类和已发现的动物种类(共存细菌的特定簇)之间的细菌状况有所不同。动物中这种未被探索的微生物多样性与被充分研究的人类微生物组形成了对比,而人类微生物组在参考数据库中表现得更好。未描述的物种中的富集度最高的是疣状菌属(Verrucomicrobia),这是一个存在于水、土壤和人类肠道中的门,但培养物种相对较少。
确定了多种途径和直系同源物,这些途径和直系同源物在特定的动物性状中显着丰富,并表明功能性景观与这些性状相关。这些功能中的一些功能提示了野生生物微生物群的新角色和特性。绘制野生动物的微生物群落图也可能有助于野生微生物的保护工作。
五,重述了首次通过扩增子测序发现的结果,包括食草动物微生物组比食肉动物微生物组更加多样化。这是一个比较重要的发现,是否说明植物性饮食可以提高微生物多样性?此外,不同动物群体的微生物组编码的遗传途径因宿主饮食、体型和其他特征而不同。
六,野生动物的微生物区系也是动物和人类病原体的天然库,如当前的COVID-19大流行一样,通过对野生生物微生物景观的广泛的基因组集合可以阐明其传播到人群中的时间和途径。
一,使用MAGs(宏基因组组装的基因组)限制了研究其中一些目标的拓展,即保护医学和生态上重要的细菌菌株。有些微生物物种将需要分析未组装的读取、培养或富集技术,而不是本研究中使用的全基因组测序。
二,即使是那些基因组被MAG组装捕获的细菌,这些组装体也倾向于排除“辅助”基因组,即在不同菌株间存在的基因。然而,这些基因往往在适应特定的宿主和环境中发挥作用。例如,抗菌素抗性、致病性和能量收集是经常由移动元件或其他辅助基因编码的性状。
三,Levin等人检测到的大多数非特征微生物在宿主体内的活动,以及它们是稳定地定殖在动物体内还是短暂地通过它们的胃肠道的问题仍然存在。在这个庞大的数据集上测试每个假设需要大量的计算、解释和实验验证。
参考文献:
Levin D, Raab N, Pinto Y, et al. Diversity and functional landscapes in the microbiota of animals in the wild[J]. Science, 2021, 372(6539).
Coleman M. Diagnosing nutritional stress in the oceans[J]. Science, 2021, 372(6539): 239-240.
L.-X. Chen, K. Anantharaman, A. Shaiber, A. M. Eren, J. F. Banfield, Genome Res. 30, 315 (2020)
E. C. Lindsay, N. B. Metcalfe, M. S. Llewellyn, J. Anim. Ecol. 89, 2415 (2020)
谷禾健康
我们知道,SARS-CoV-2感染引起的新型冠状病毒肺炎COVID-19,最常见的症状是发烧和呼吸道不适。也有胃肠道感染的报道,症状包括腹泻、恶心、呕吐、腹痛和食欲不振等。
胃肠道感染SARS-CoV-2或其他病毒后,部分患者可能发生胃肠道微生物群改变。此外,部分新冠肺炎患者可能会接受抗生素治疗,这也可能会扰乱胃肠道稳态。
本文就以下问题,对COVID-19,胃肠道疾病,程度菌群,营养干预之间的联系进行探讨。
腹泻患者粪便样本中病毒RNA阳性率更高?
COVID-19和胃肠道疾病有什么联系?
肠-肺轴在COVID-19的发展中发挥作用?
肠道菌群在其中扮演什么角色?
针对COVID-19不同严重程度的措施?
营养干预是否有效?如何干预?
……
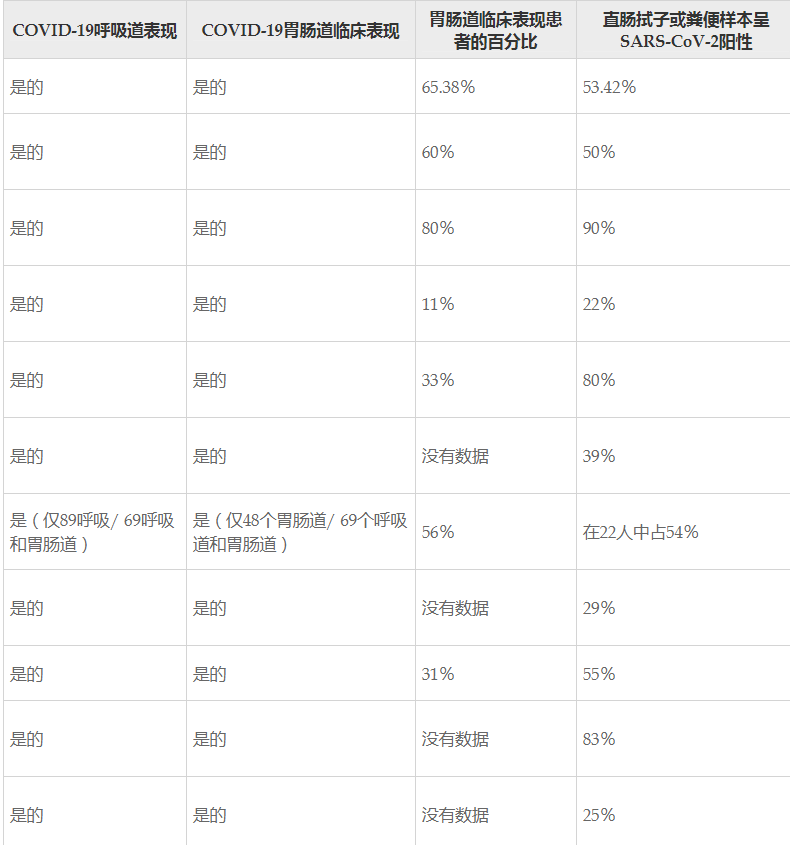
SARS-CoV-2在鼻咽清除后仍能在粪便中呈阳性,并可能继续具有传染性。
Alberca GGFet al., World J Gastroenterol. 2021
COVID-19最常见的胃肠道症状是腹泻、恶心、腹痛和食欲不振。
在病毒性胃肠道感染后,一些患者可能会出现胃肠道微生物群的改变,如变形菌增加、拟杆菌减少。
最近的一份报告确定了COVID-19住院患者肠道微生物群的改变,有益共生细菌减少,条件致病菌增加。
肠道组织和粪便也可能是一个贮存器。最近研究表明,即使鼻咽和口咽拭子检测SARS-CoV-2RNA呈阴性,患者粪便样本中仍然有可能含有SARS-CoV-2RNA.
另有研究指出,腹泻患者的COVID-19症状持续时间延长,而腹泻患者的粪便样本中病毒RNA的阳性率更高。
目前的假设是可能涉及肠道组织上的直接病毒感染和对该病毒的局部免疫反应。实际上,在粪便COVID-19患者中检测到SARS-CoV-2 RNA可能表明粪-口传播。
除了SARS-CoV-2对肠道免疫反应的影响外,COVID-19患者还可能发生细菌共感染和继发感染,也就是说必须使用抗生素。即使COVID-19患者没有细菌共感染,对其抗生素的使用也是在临床上常见的做法。这也可能会破坏胃肠道微生物组。
微生物群受环境因素,食物,药物和感染的影响。根据人体的部位不同,每个微生物群具有独特的特性。许多因素会影响微生物组的组成,例如局部pH值,温度和养分。
微生物几乎可以在人体的每个小生境中发现,但胃肠道是宿主与人体中微生物之间最大的界面。大约有1013-1014胃肠道中的微生物,其基因组含量比人类基因组中更大。
微生物与人类有共生关系。共生微生物对于人类健康,调节许多生理功能,物质降解,代谢产物的产生和免疫反应至关重要。
微生物能激活和刺激T辅助细胞(Th)1、Th2、Th17和T调节细胞(Treg)的分化,从而调节免疫应答。肠道菌群多样性低会增加对局部和肺部疾病的易感性。
微生物组的环境处于不断调节中,受到外部微生物和其他非细菌化合物(例如肠道菌群中的食物和病毒)的调节。微生物群的突然变化会导致共生细菌的失衡和/或条件致病菌增加,增加对疾病的敏感性。
微生物群对于人类免疫系统的发展至关重要,并且可以影响局部和非局部免疫反应,例如肠-肺轴。肠道菌群的改变可以调节呼吸系统疾病的发展。在患有肠道功能障碍的患者,例如已确诊的肠道炎性疾病的患者或肥胖患者中,肠道菌群可能是发生严重COVID-19的次要危险因素。
此外,患有COVID-19的患者可能会出现胃肠道菌群失调,且产短链脂肪酸的细菌减少。
肠道菌群的破坏可以触发与代谢功能障碍,肥胖症,癌症,和神经障碍相关的炎症事件。某些微生物的增加或减少可以增加对先天性免疫受体的刺激,例如核苷酸结合寡聚化域样受体和Toll样受体。该受体的刺激触发几个促炎症信号和细胞因子和趋化因子的产生,它们调节适应性免疫系统,影响局部和全身免疫反应。
微生物群激活免疫细胞上的Toll样受体可在宿主体内产生低度全身性炎症,这与代谢和免疫反应的改变有关。微生物组的改变与疾病的发展有关,例如肥胖,炎症性肠病和癌症。
因此,SARS-CoV-2胃肠道感染和肠道稳态的改变可能与疾病的发展有关,并影响对口服疫苗和药物的免疫应答以及病原体的免疫应答。
一些研究强调了营养物质在调节对SARS-CoV-2或直接抗病毒和/或抗SARS-CoV-2特性的免疫应答中的潜在作用。
营养方面如肥胖,营养不良,和微量营养素缺乏已经假定作为严重COVID-19的危险因素。然而,人类微生物群的组成受到许多因素的影响,包括饮食成分。一些细菌可以发酵不可消化的碳水化合物(益生元),例如可溶性纤维,以产生短链脂肪酸(SCFA)。
短链脂肪酸
短链脂肪酸可以刺激共生细菌的生长和/或活性,并与健康有关。短链脂肪酸可以诱导肠屏障的调节,降低氧化应激,控制腹泻,并调节肠能动性,并且还诱导局部和全身抗炎作用。
短链脂肪酸可诱导抗炎细胞因子的释放,如IL-10,促进Th细胞和炎症性疾病的调节,包括炎症性肠病。
短链脂肪酸分为乙酸,丙酸和丁酸。所有短链脂肪酸都具有潜在的抗炎作用,降低前列腺素E2和炎症因子。
乙酸盐能抑制含有3个炎症小体的NLR家族pyrin结构域的激活;
丙酸盐能抑制组蛋白脱乙酰酶,减轻脂多糖引起的炎症。
丁酸盐具有抗癌和减少肺部炎症的作用。
总的来说,研究表明短链脂肪酸有直接抗炎作用或调节微生物群在局部(肠道)和非局部炎症中具有潜在的抗炎作用。
益生菌
对于胃肠微生物的调节,另一个干预是通过益生菌。益生菌是可以被摄入并与宿主产生有益相互作用的细菌。
一些研究调查对肠道菌群益生菌的作用,但有关它们移植物于共生微生物群的能力的结果相互矛盾。
然而,益生菌产生代谢物可影响共生微生物群,肠屏障,免疫系统。益生菌还可以帮助预防或治疗细菌和病毒感染。益生菌的使用可以提高感染流感病毒的小鼠的存活率。除流感病毒外,研究还显示出对呼吸道合胞病毒感染的有益保护作用。
益生菌在呼吸道病毒感染中的健康益处是由于细胞因子的产生和氧化应激的调节; 因此,它们可能是严重COVID-19期间促炎性细胞因子,趋化因子和氧化应激异常释放的辅助治疗。
最常用的益生菌是乳杆菌,双歧杆菌和肠球菌。尽管有大量研究表明它们具有健康益处,但目前在益生菌菌株之间涉及理想剂量和菌株之间比较的知识尚存在差距。
高纤维饮食
高纤维饮食可以诱导有益菌的繁殖,比如乳酸杆菌属和双歧杆菌属在胃肠道。实际上,高纤维饮食可能增加免疫球蛋白A的生产和调节干扰素-γ和白细胞介素(IL)-10的分泌,这有助控制胃肠道感染。
益生元
益生元可以通过一种称为交叉喂养的机制改变微生物群的组成,当益生元的发酵产物可以被另一种微生物作为底物使用。
益生元可以改变微生物群的另一种机制是通过改变pH值。
发酵产物主要是酸,这可能会导致肠道pH降低,抑制酸敏感细菌(如拟杆菌)的生长并促进产生丁酸的细菌生长。
病毒感染可以改变胃肠道微生物群。一份报告确认了COVID-19患者粪便样本中乳酸杆菌和双歧杆菌的减少。同样,必要或不必要使用抗生素会干扰COVID-19患者的微生物组。
肠道微生物组的改变包括在SARS-CoV-2清除后的30天内,柔嫩梭菌群Faecalibacterium prausnitzii、Eubacterium rectale和双歧杆菌的减少。
COVID-19中的微生物群失调可能与炎症反应有关,并且可能是COVID-19解决后的一个持久性问题,这表明营养干预可能在抑制炎症反应和重建COVID-19患者胃肠道稳态方面发挥作用。
低纤维饮食增加胃肠道感染的易感性
饮食和营养干预可以调节免疫反应,增加或抑制抗病毒反应。西式饮食(低纤维含量)可增加拟杆菌和减少厚壁菌,并与肥胖的发展有关,后者是严重COVID-19的危险因素。
虽然有报告指出肥胖者粪便样本中的短链脂肪酸增加,但短链脂肪酸与控制食欲和增加能量消耗有关。
此外,非常低纤维的饮食可以降低肠粘液的产生,增加胃肠道感染的易感性。
饮食的改变可以改变微生物群的组成。微生物群落处于不断变化之中,并且还受到食物消耗的季节性影响。事实上,减少纤维的消耗可以在短短的1天内改变微生物群,减少短链脂肪酸的产生。
高纤维饮食减少肺部炎症,促进抗炎反应
相反,高纤维饮食增加了肠道微生物群中的厚壁菌和放线菌,并增加了短链脂肪酸的产生,这有助于通过肠-肺轴减少肺部炎症,并通过IL-10的产生和Treg细胞促进局部和全身的抗炎反应。
益生菌治疗减少呼吸机相关肺炎
摄入益生菌可能会稳定或改变胃肠道微生物组,特别是在微生物组受到干扰后,如抗生素使用后或胃肠道感染。
使用枯草芽孢杆菌Bacillus subtilis和粪肠球菌Enterococcus faecalis的益生菌治疗已被证明可减少呼吸机相关肺炎。
鼠李糖乳杆菌Lactobacillus rhamnosus治疗可减少机械通气患者的呼吸机相关性肺炎和艰难梭菌相关性腹泻,使其成为重症监护病房辅助机械通气患者治疗的可能补充。
使用乳酸杆菌治疗可能特别重要,因为呼吸道感染可能导致乳酸菌减少,肠杆菌科增加和肠道IL-17炎症。
调节免疫应答
靶向IL-17被认为是治疗COVID-19的一种方法,因为与中度COVID-19患者相比,重度COVID-19患者的IL-17增加。
IL-17和产生IL-17的辅助性T细胞(Th17)、三型固有淋巴细胞、不变的自然杀伤细胞和γδT细胞参与了COVID-19的免疫应答。IL-17受体表达于许多不同细胞的表面,如中性粒细胞、嗜酸性粒细胞、上皮细胞、角质形成细胞和成纤维细胞。此外,IL-17可直接影响ACE2、SARS-CoV-2入口受体的表达。
IL-17阻断剂的使用,如针对IL-17A和/或IL-17受体A的单克隆抗体,可能代表了COVID-19的一种可能的治疗选择。尽管如此,IL-17在对抗肺炎链球菌Pseudomonas aeruginosa和铜绿假单胞菌Pseudomonas aeruginosa(呼吸道和肠道感染中常见的病原体)的免疫反应中是一种重要的细胞因子。
继发性细菌感染可发生在SARS-CoV-2感染后的呼吸系统,尤其是有创机械通气患者。IL-17对肠道内稳态尤其重要。因此,抗IL-17治疗应考虑呼吸道和肠道细菌感染易感性增加的可能风险。
增加短链脂肪酸辅助治疗
COVID-19患者也可能出现细胞因子风暴综合征,这可能导致多器官衰竭,并导致死亡或长期后果。在这种情况下,益生菌或益生元治疗通过增加短链脂肪酸在呼吸道感染中的抗炎作用已经被证实。
摄入高发酵纤维饮食、益生菌、口服三丁酸甘油酯(丁酸的前药)或直接服用短链脂肪酸等药物均可增加短链脂肪酸的生产和健康效益。
在这种情况下,摄入益生元和/或益生菌可代表COVID-19患者的显著预防性干预和/或康复。
显然,SARS-CoV-2可以感染胃肠道并影响肠道免疫反应和肠道微生物组。但胃肠道的SARS-CoV-2感染以及COVID-19在胃肠道稳态中的长期后果仍需进一步研究。
目前,尚无针对COVID-19的特异性治疗方法,但已对通过调节免疫应答或通过肠道微生物群进行营养干预的影响进行了研究,这可能是对COVID-19的重要干预和/或恢复的手段。
相关阅读:
参考文献
Zuo T, Liu Q, Zhang F, et al., Depicting SARS-CoV-2 faecal viral activity in association with gut microbiota composition in patients with COVID-19. Gut. 2021;70:276-284.
Yeoh YK, Zuo T,et al., Gut microbiota composition reflects disease severity and dysfunctional immune responses in patients with COVID-19. Gut . 2021
Alberca GGF, Solis-Castro RL, Solis-Castro ME, Alberca RW. Coronavirus disease–2019 and the intestinal tract: An overview. World J Gastroenterol 2021; 27(13): 1255-1266
Vieira RS, Castoldi A, Basso PJ, et al., Butyrate Attenuates Lung Inflammation by Negatively Modulating Th9 Cells. Front Immunol. 2019;10.
Zhang N, Gong Y, Meng F et al., Comparative study on virus shedding patterns in nasopharyngeal and fecal specimens of COVID-19 patients. Sci China Life Sci. 2020