-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
医生门诊大概多数都遇到过这类病人——愁眉不展、全身都在痛、精神萎靡,可检测化验指标一通下来却全是阴性结果。面对这种情况,医生脑子里闪过的:是癔症还是类风湿关节炎?
其实,临床上其实还有一类并非少见的、却很容易被忽视的慢性疼痛疾病——纤维肌痛综合征(FMS)。
纤维肌痛以全身广泛性疼痛以及明显躯体不适为主要特征,常伴有疲劳、睡眠障碍、晨僵以及抑郁、焦虑等精神症状。因其常与其他疾病共病,藏匿在常见病下,很难被发现。
传统上认为这是一种非炎症性疾病,但随着研究不断深入,人们发现其发生发展并不只是肌肉的问题,中枢敏化、低度炎症、氧化应激、自主神经系统功能紊乱、神经炎症、肠道菌群改变都参与该病的发病机制。
这些新的认识也让饮食和营养干预逐渐受到关注。饮食可能通过影响炎症反应、氧化应激、代谢状态、肠道菌群等多个环节,对纤维肌痛相关症状产生一定影响。因此,抗炎饮食以及部分营养补充剂,也开始被视为综合管理中的潜在辅助策略。
关于纤维肌痛综合征,中华医学会以及北京大学风湿免疫研究所都专门写过专业的科普,此前谷禾写过慢性疼痛的发病风险因素,病因和主要致病机制等。
久治不愈的疼痛,基于肠道菌群调节的科学依据与临床前景
本文将进一步讨论纤维肌痛综合征发病的一些最新研究机制,以及我们日常饮食方式中的饮食方式和生活方式,包括地中海饮食、植物性饮食、低 FODMAP 饮食、排除性饮食、Omega-3 脂肪酸和抗氧化剂等补充剂和运动、心理干预等对纤维肌痛综合征症状改善或预防作用。
注:本文纳入的文献,包括纤维肌痛饮食与营养干预相关的原创研究、随机及非随机临床试验、观察性研究、系统评价、Meta 分析及叙述性综述,希望在现有研究基础上,对相关干预方式的潜在作用进行较为全面、客观的梳理和综合分析。
纤维肌痛症是一种慢性疼痛疾病,其全球患病率在 0.2%~6.6%之间不等。
纤维肌痛并不罕见
综合各项研究数据后估计其患病率约为 2%-3%。该病在女性中的发病率高于男性,尤其在 20-55 岁的人群中更为常见。
不同地理区域和临床环境下的患病率也存在差异,城市人口中的发病率通常更高。研究报道在印度城市人口和农村人口的患病率分别为每 1000 人中有 41.2 例和 32.4 例。
纤维肌痛的三类典型表现
广泛存在的疼痛
这是最主要的症状,也是所有纤维肌痛的患者都存在的症状。疼痛遍及全身各处,呈弥漫性分布,疼痛的性质也多种多样,可以表现为钝痛、刺痛、麻木痛、刀割痛、放射痛等。
编辑
这种疼痛并不是患者想象出来的。过去,由于纤维肌痛患者往往主诉较多,又常伴随焦虑、抑郁等情绪问题,一些患者的疼痛曾经被医生误认为是精神上的臆想。
但目前普遍认为,纤维肌痛患者所感受到的疼痛是真实存在的,而且部分患者疼痛程度较重,即使经过休息也不一定能够明显缓解。此外,部分患者还会表现出明显的压痛或痛觉敏感。
编辑
疲劳、睡眠和认知问题常常同时出现
很多患者还会长期受到疲劳和睡眠障碍的困扰。这里的疲劳不是忙碌之后正常的疲劳,而是一种持续性的慢性疲倦感,即使经过休息或睡眠,也还是疲劳。
睡眠问题又会进一步影响白天的精神状态,久而久之还可能伴随焦虑、易怒、情绪低落等问题,并影响工作、学习以及日常生活,影响到待人处事的方式,恶化人际关系。
与此同时,一部分患者还会出现认知功能方面的变化,例如注意力难以集中、记忆力下降、思维变慢等。
其中,一种较有代表性的认知问题被称为“纤维雾”。
注:纤维雾(Fibro Fog),或纤维肌痛脑雾,患者常形容自己类似于在雾中思考,思维不清晰,很难理解周围的环境,很难弄清楚别人想说什么,也很难集中注意力。研究表明, 50%~80%的纤维肌痛患者存在这类认知问题。
可能伴随其他多种不适
有些患者会感觉关节肿胀、疼痛或身体僵硬,但检查时又未必能够发现与症状相对应的明显异常;部分患者还可能伴随头痛、胃肠道不适,以及肠易激综合征、膀胱刺激相关症状等。
这些症状的严重程度也并非始终保持不变。不同患者之间存在明显差异,同一个患者在不同时间的症状也可能有所波动。天气变化、过度劳累以及精神紧张等因素,都可能使症状进一步加重。
总而言之,纤维肌痛的症状比较主观,缺乏特异性,辅助检查的结果多为正常,压痛点的存在可以为临床实践提供可靠的证据。
为什么纤维肌痛容易被忽视?
纤维肌痛的一个典型特点是:患者的不适明显,但常规检查却找不到与症状相对应的异常。
患者可能长期存在全身疼痛、疲劳、睡眠障碍、认知问题等多种不适,但这些症状本身缺乏特异性,在其他疾病中也可能出现。与此同时,抽血、影像学等常规检查结果又常常没有明显异常,这使得纤维肌痛很容易与类风湿关节炎、甲状腺疾病以及其他可能引起慢性疼痛和疲劳的疾病混淆。
也正因为如此,一些患者在得到明确诊断之前,往往需要辗转多个科室、接受多项检查。尽管近年来人们对纤维肌痛的认识不断提高,但漏诊和延迟诊断的情况仍然存在,其实际造成的疾病负担也可能因此被低估。
纤维肌痛的风险因素
目前,纤维肌痛的确切病因仍未完全明确,也很难用某一个单独因素解释疾病的发生。
纤维肌痛在女性中更为常见,也可以发生于任何年龄,但成年人及中年人群更常见。
纤维肌痛具有一定的家族聚集性。近亲中有纤维肌痛患者的人,其他家庭成员发生该病的风险可能相对更高。
类风湿关节炎、系统性红斑狼疮以及其他慢性疼痛性疾病患者,发生纤维肌痛的风险可能更高。
长期睡眠不足、睡眠质量差或睡眠节律紊乱,与纤维肌痛发生风险升高有关,也可能进一步增加疼痛敏感性和疲劳感。
超重、肥胖以及较低的身体活动水平都与纤维肌痛风险增加存在一定关联。肥胖还可能通过低度炎症和代谢异常加重疼痛。
长期精神压力、重大生活事件、童年不良经历或创伤后应激障碍(PTSD)等,可能增加纤维肌痛发生或症状加重的可能性。
部分患者在感染、严重外伤、手术等事件后出现纤维肌痛症状。
近年来研究发现,纤维肌痛患者可能存在肠道菌群及其代谢改变。菌群失衡可能通过脑-肠轴、免疫和代谢等途径影响疼痛敏感性。
这一潜在机制将在本文后面的章节中进一步详细介绍。
诊断关键:排除+症状匹配
目前没有特异性的检查(如抽血、拍片)能直接确诊纤维肌痛综合征,医生主要通过以下两点判断:
症状是否符合
满足“全身广泛性疼痛≥3个月”,且按压18个典型“压痛点”中至少11个有明显疼痛(部分最新标准已简化,更关注疼痛分布和伴随症状)。
注:早期的纤维肌痛诊断标准曾十分强调压痛点;而近年来的诊断标准已经逐渐弱化对固定压痛点数量的依赖,更加重视疼痛分布及伴随症状的整体评估。
排除其他疾病
需通过检查(如血常规、风湿因子、肌酶、X线等)排除类风湿关节炎、强直性脊柱炎、甲状腺疾病、贫血等可能引起类似疼痛的疾病。
① 腰部上方和下方的双侧疼痛,以集中疼痛为特征;
② 持续至少3个月的慢性全身疼痛,以18个特定身体部位中至少11个部位的触诊疼痛为特征。
除表现为全身广泛性疼痛外,还可伴发肠易激综合征、间质性膀胱炎、颞下颌关节功能障碍等相关症状。
随着研究不断深入,人们发现,纤维肌痛可能并不只是肌肉或关节本身的问题,中枢疼痛处理、神经免疫反应、氧化应激、自主神经功能以及肠道微生物群等多个环节都可能参与其中。
那么,这些变化究竟如何导致持续性的疼痛、疲劳和其他症状?饮食又可能通过哪些环节产生影响?这就需要进一步从纤维肌痛的病理生理机制说起。
中枢敏化
中枢敏感化被认为是纤维肌痛症背后的核心机制,其表现为中枢神经系统的兴奋性增加,从而导致疼痛抑制功能受损。理解这些核心机制,是后续探讨肠道菌群如何影响疼痛的关键。
疼痛信号为什么会被放大?
中枢敏化一旦形成,身体就像一个报警器,灵敏度调到很高,一点点刺激就痛。
编辑
部分纤维疼痛患者还有同一个隐藏问题:感觉能力下降,本体觉被抑制。
本体觉,就是你对身体位置、肌肉状态的内在感知。长期中枢敏化,会一步步让人摸不清自己的身体、感知变得破碎麻木、越来越难区分“紧张”和“疼痛”。
最终形成一个死循环:
编辑
这一切,都和一个关键脑区密切相关——中脑。中脑是:疼痛中枢、泌尿中枢、焦虑与情绪中枢、多巴胺分泌中枢、高级交感神经中枢。
中脑长期过度兴奋,后果是:
谷氨酸、NMDA受体与疼痛敏感性
在分子层面,中枢敏化与兴奋性和抑制性神经信号之间的平衡改变有关,其中谷氨酸-NMDA受体通路受到较多关注。
谷氨酸是中枢神经系统重要的兴奋性神经递质。当谷氨酸能神经传递持续增强时,NMDA受体活性增加,可促进神经元兴奋和疼痛信号传递,使神经系统更容易对后续刺激产生较强反应。关于谷氨酸,谷禾之前的文章有详细阐述:
兴奋神经递质——谷氨酸与大脑健康
那么意味着如果我们可以监测到神经递质,例如抑制性神经递质GABA或兴奋神经递质谷氨酸等的异常,或通过干预神经递质的平衡状态,来缓解中枢敏化及其敏化带来的一系列慢性疼痛和纤维肌痛。
编辑
<来源:谷禾肠道菌群检测数据库>
纤维肌痛患者脑脊液和脑组织中的谷氨酸浓度升高,加上 P 物质水平上升以及血脑屏障通透性改变,都可能加剧疼痛敏感性并导致中枢疼痛的放大效应。
注:P物质(Substance P)是一种神经肽,主要参与疼痛信号传递和炎症反应。
饮食可能从哪里介入?
膳食因素也可能通过多酚、Omega-3 脂肪酸及其他生物活性营养素所具有的抗炎和抗氧化作用来影响这些机制。
例如镁可以通过调节 NMDA 受体活性来降低神经细胞的过度兴奋,而Omega-3 脂肪酸则可通过改善神经元膜功能及谷氨酸的转运来维持谷氨酸能系统的稳态。
尽管直接的临床证据仍较为有限,但这些机制共同可能有助于调控纤维肌痛中的神经炎症反应与中枢敏感化现象。
神经炎症
神经炎症已被认为是纤维肌痛病理生理过程中重要的致病因素,神经炎症也是多种神经系统疾病的重要发病机制之一,越来越多的证据表明中枢神经系统内的神经免疫反应存在紊乱。
神经炎症:神经系统疾病的共同病理基础与治疗新方向
2025年发表在《Science》杂志发表了一篇由首都医科大学施福东教授与加拿大卡尔加里大学 V. Wee Yong 教授共同撰写的综述,系统阐述了神经炎症在多发性硬化、卒中、阿尔茨海默病及帕金森病等疾病中的核心作用,并基于最新研究提出了靶向免疫调节的治疗策略。
编辑
神经炎症是如何发生的?
神经炎症的本质是中枢神经系统(CNS)内免疫细胞的异常激活与外周免疫细胞的浸润。当 CNS 遭遇损伤或蛋白异常聚集时,小胶质细胞与星形胶质细胞会被危险相关分子模式(DAMPs)激活,同时外周 T 细胞、单核细胞等通过血脑屏障侵入,形成 “炎症级联反应”。
尽管这一过程初始旨在清除病原体或修复损伤,但其过度激活会释放蛋白酶、细胞因子及活性氧(ROS),反向推动神经退行性变,形成难以阻断的恶性循环。
纤维肌痛中发现了哪些神经炎症信号?
正电子发射断层扫描研究显示,纤维肌痛患者存在胶质细胞活化现象,而 IL-8等趋化因子的水平升高则表明神经元与胶质细胞之间的相互作用增强,进而导致疼痛敏感度的上升。
纤维肌痛患者体内的活化小胶质细胞会释放多种促炎细胞因子,包括肿瘤坏死因子-α(TNF-α)和IL-1β,这些因子会显著加剧疼痛并促进神经炎症反应。
不过,PET 成像的结果应谨慎解读,因为它仅能提供小胶质细胞活化的间接证据,还需通过进一步研究加以验证。
此外,IL-1、IL-6 以及TNF-α等细胞因子已知会影响疼痛处理机制,可能在维持纤维肌痛患者的中枢敏感化状态及慢性疼痛方面发挥作用。
饮食可能从哪些环节介入?
现有证据表明,神经炎症在纤维肌痛的持续存在与病情进展中起着重要作用。因此,富含多酚、Omega-3 脂肪酸及其他植物来源抗氧化剂的抗炎饮食方案可能有助于调节这些神经炎症通路,从而减轻症状的严重程度。
氧化应激与线粒体功能障碍
氧化应激如何放大疼痛与疲劳?
谷禾以前写过大脑退行疾病的两个重要诱因:氧化应激和肠道失衡,今天不赘述了,感兴趣的可以点击了解下。
编辑
本文要讨论的纤维肌痛与氧化应激及线粒体功能障碍密切相关,后者表现为线粒体结构异常、酶活性降低以及 ATP 生成障碍。较高的活性氧水平及其造成的氧化损伤被认为会加剧纤维肌痛患者的疼痛、疲劳感,并促进炎症反应的发生。
抗氧化营养素的潜在作用
营养干预措施显示出缓解这些病理变化的潜力。维生素 C 和 E 等抗氧化剂以及多酚类物质可减少氧化损伤,而镁和辅酶 Q10则有助于维持线粒体功能。辅酶 Q10 在线粒体 ATP 合成中起着关键作用,同时也是一种强效的抗氧化剂,有望帮助减轻纤维肌痛症患者因氧化应激引起的症状。
此外,一些产品也开始逐渐进入医药市场以应对氧化应激,如阿魏酸 (FA),因为它具有抗氧化和抗炎特性。它通过增强 BDNF 和神经生长因子 (NGF) 以及一些具有抗炎特性的神经肽的产生来帮助神经干细胞增殖。
益生菌在抗氧化应激中的作用
2017 年的研究,益生菌如植物乳杆菌 NCIMB 8826、发酵乳杆菌 NCIMB 5221和动物双歧杆菌也能通过细菌 FA 酯酶大量产生阿魏酸。
由于其治疗效果,它在阿尔茨海默治疗中的应用越来越受到关注,用阿魏酸进行预处理已被证明可以减少 Aβ 原纤维并治疗阿尔茨海默小鼠的神经炎症。产生阿魏酸的益生菌通过清除 ROS 来抑制 β-淀粉样蛋白原纤维的形成和聚集。
自主神经系统功能紊乱
自主神经如何维持身体的平衡?
所谓自主神经功能失调或紊乱,并不是一个可以仅凭症状自行确诊的结论,更像是身体长期无法顺利在“工作”和“恢复”之间切换时,呈现出来的一组状态。
它提醒我们的不是某一处坏掉了,而是整个身体已经太久没有回到自己的节律里。
自主神经,是身体不用你指挥也会运行的系统
心脏跳动、呼吸调整、胃肠蠕动、血管收缩、体温变化和汗液分泌,大多不需要我们主动控制,是由自主神经系统默默协调。
它主要包括负责应对压力的交感神经,以及帮助身体休息、消化和恢复的副交感神经。
编辑
健康并不意味着永远放松,而是能够灵活切换,需要行动时调得起来,需要休息时退得下来。
当身体长期停留在“高警觉”状态
很多现代人的问题,恰恰不是交感神经偶尔兴奋,而是兴奋以后迟迟无法退出;副交感神经不是完全“失活”,而是越来越难获得足够的恢复时间。
自主神经紊乱的人,最典型的状态不是忙,而是停不下来。身体坐在沙发上,脑子还在处理工作;人已经躺到床上,下颌、肩膀和腹部依然暗暗用力;明明没有危险,心里却总有一种事情还没做完的紧迫感。
这种紧张持续久了,身体会把警觉误认为正常。
长期失衡会影响多个身体系统
呼吸逐渐停留在胸口,横膈膜活动减少,肩颈开始帮助吸气;胃肠蠕动受到影响,饭后更容易胀堵;盆底、腹股沟和下颌持续收紧,睡眠也会停留在较浅的层次。
很多人以为自己只是想得太多,实际上,头脑的忙乱往往只是身体高警觉的一个表现。
真正让人疲惫的,不只是白天做了多少事情,而是身体到了晚上仍然没有收到“今天已经结束”的信号。
纤维肌痛中的自主神经失衡
研究文献支持自主神经功能紊乱日益被视作纤维肌痛的重要特征。针对心率变异性所开展的研究表明,患者的交感神经系统活动增强,而副交感(迷走)神经系统活动则减弱(和上面的自主神经系统功能紊乱类似),这提示纤维肌痛患者存在自主神经调节异常。
心率变异性是一种用于无创评估自主神经系统功能的指标,已被广泛用于检测纤维肌痛患者的自主神经功能紊乱情况。
持续的交感-迷走神经失衡可能加剧纤维肌痛患者常见的疼痛、疲劳、睡眠障碍以及应激反应异常等问题。
肠道微生物群的改变
肠道菌群在与中枢神经系统功能及相关疾病的复杂联系,包括纤维肌痛,正通过“微生物群-脑-肠轴”(Microbiota-Gut-Brain Axis, MGBA)这一概念得到系统性的阐释。
纤维肌痛患者肠道微生物群变化
编辑
DOI: 10.1111/1756-185X.15021
脑-肠-菌轴构成了肠道微生物影响宿主疼痛感知和调控的主要生理基础。其主要通讯途径包括:
肠道菌群如何通过“脑-肠轴”影响纤维肌痛?
肠道菌群不仅帮助消化食物,也会通过“微生物群-脑-肠轴”与大脑持续交流。这一系统像一张双向通讯网,将肠道、免疫系统、内分泌系统和神经系统连接起来。因此,肠道菌群失衡可能不仅引起腹胀、排便异常,还可能参与焦虑、睡眠问题以及纤维疼痛的发生和维持。
编辑
doi: 10.13107/jocr.2026.v16.i04.7166
这种影响主要通过以下四条途径实现。
神经通路:迷走神经是肠道与大脑的“信息高速路”
迷走神经是人体重要的脑神经,连接脑干与胃肠道、心脏等器官。它的多数神经纤维负责把肠道信息传给大脑,因此可被看作肠道向大脑汇报情况的主要通道。
肠道菌群虽然不会直接接触大脑,但其代谢产物能刺激肠壁中的肠内分泌细胞。这些细胞会释放5-羟色胺、胰高血糖素样肽-1(GLP-1)、胆囊收缩素等信号分子,进一步激活迷走神经末梢。
例如,膳食纤维经菌群发酵后产生的短链脂肪酸,尤其是丁酸,可促进肠道释放5-羟色胺。该信号经迷走神经传至脑干的孤束核,再影响杏仁核、丘脑、岛叶和前扣带皮层等参与疼痛、情绪和内脏感觉的脑区。
就是说,肠道状态可影响人对疼痛的敏感程度,以及疼痛伴随的焦虑、恐惧和不适体验。
编辑
动物研究发现,部分益生菌能够减轻焦虑、抑郁样行为和内脏痛;而切断迷走神经后,这些作用会明显减弱甚至消失,提示迷走神经是菌群发挥部分神经调节作用的重要桥梁。
同时,这条通路也是双向的:压力、焦虑和睡眠不足等大脑信号,也可通过迷走神经影响肠道蠕动、消化液分泌、黏液层和肠道屏障,进而改变菌群生存环境,形成“情绪—肠道—疼痛”的循环。
免疫通路:菌群失调可引发低度炎症,放大疼痛
肠道是人体最大的免疫器官之一。正常菌群能帮助免疫系统学会区分“朋友”和“敌人”,既抵御病原体,又避免炎症反应过度。
编辑
doi.org/10.1111/1756-185X.15021
有些菌群及其代谢物能促进调节性T细胞(Treg)形成。Treg可产生IL-10等抗炎因子,相当于免疫系统的“刹车”,有助于限制炎症和疼痛。相反,某些菌群变化可能促进Th17细胞及IL-17等促炎通路活跃,增加炎症性疾病和疼痛的风险。
当菌群多样性下降、有益菌减少、潜在有害菌增加时,肠道屏障可能受损,出现俗称的“肠漏”。此时,细菌成分如脂多糖(LPS)更容易进入循环,激活免疫细胞,促使TNF-α、IL-1β、IL-6等炎症因子升高。
这些炎症因子会降低外周痛觉神经的激活阈值,使原本不太强的刺激也更容易感到疼痛,称为外周敏化。它们还可能影响脊髓和大脑中的小胶质细胞、星形胶质细胞,促进神经炎症和中枢敏化。中枢敏化会使疼痛持续更久、范围更广,也更难缓解,是许多慢性疼痛的重要机制。
内分泌通路:肠道菌群参与应激系统调节
下丘脑—垂体—肾上腺轴(HPA轴)是人体应对压力的核心系统,可调控皮质醇等应激激素。短期应激有助于应对危险,但长期压力会扰乱激素节律,增加焦虑、抑郁、睡眠障碍和慢性疼痛的风险。
研究发现,缺少正常肠道菌群的动物对应激的HPA轴反应往往过强;在早期补充特定菌群后,这种异常可得到一定改善。菌群代谢物、炎症反应及肠道屏障状态,都可能影响HPA轴活性。
因此,压力可通过神经和激素改变菌群;而菌群失调又可能通过炎症和代谢信号加重应激反应。长期处于这种循环中,机体更容易形成疼痛敏感状态。
代谢通路:菌群产生的小分子可影响免疫与神经功能
肠道菌群可把膳食纤维、胆汁酸和色氨酸等转化为具有生物活性的物质。
短链脂肪酸包括乙酸、丙酸和丁酸。它们既是肠道上皮细胞的重要能量来源,也能增强肠屏障、减少炎症、促进Treg细胞形成。丁酸还可能影响神经递质平衡、神经营养因子及小胶质细胞活性。动物实验提示,补充丁酸盐或增加膳食纤维,可能减轻炎症性疼痛和部分神经病理性疼痛。
编辑
次级胆汁酸由肠道菌群参与生成,可作用于TGR5等受体。相关信号与免疫调节、肠道功能和内脏痛调控有关。
菌群代谢的色氨酸代谢物也十分重要。菌群可影响5-羟色胺、犬尿氨酸和吲哚类物质的生成。这些分子与情绪、睡眠、免疫和疼痛均有关。例如,某些代谢失衡可能增强NMDA受体相关的兴奋性信号,促进神经炎症和疼痛敏化。
肠道菌群可通过迷走神经传递肠道信号,通过免疫系统调节炎症,通过HPA轴影响应激反应,并借助多种代谢物作用于肠道、神经和免疫细胞。菌群失调、肠屏障受损和慢性低度炎症,可能共同推动疼痛从短暂的保护性反应转变为持续性纤维肌痛。
– 尽管目前有些证据强度仍较有限 –
地中海饮食
地中海饮食以大量摄入水果、蔬菜、全谷物、豆类、坚果、橄榄油和鱼类为特点,其抗炎作用早已得到广泛认可。
遵循地中海饮食可通过减少促炎细胞因子的产生、改善免疫与代谢功能以及增强抗氧化能力来降低炎症水平。
橄榄油富含单不饱和脂肪酸和多酚,再加上鱼类中的ω-3 脂肪酸,能够通过调节炎症信号通路并减轻氧化应激,进一步发挥这些作用。
一项前瞻性、随机化、双盲、安慰剂对照的临床试验,共有 250 名女性参与,其中 206 名患有纤维肌痛,44 名为对照组。参与者在六个月的时间里分别摄入添加了特级初榨橄榄油的地中海式饮食或精炼橄榄油(作为安慰剂)。
结果表明,特定分类群随着特级初榨橄榄油的增加而显著增加,包括脆弱拟杆菌、Anaerotruncus colihominis;产丁酸菌如普拉梭菌、Roseburia intestinalis、Agathobacter。摄入特级初榨橄榄油可能有助于促进抗炎和代谢性细菌的生长。
对每组在各个时间点的治疗与安慰剂组的差异分析,以基线值为参考点
编辑
doi.org/10.3390/life16060894
这些特点与纤维肌痛的部分病理生理机制具有一定联系。纤维肌痛可能涉及低度炎症、氧化应激、免疫调节异常以及肠道菌群改变,因此,提高地中海饮食的依从性和整体饮食质量,可能有助于改善部分患者的症状和生活质量。
同时,地中海饮食富含植物性食物和膳食纤维,也可能通过影响肠道菌群及其代谢产物,为纤维肌痛的饮食干预提供另一条潜在途径。
植物性饮食
以植物性食物为主的饮食模式,包括素食和纯素食,富含纤维、抗氧化剂以及具有明确抗炎和抗氧化作用的植物化学物质。
其较高的纤维含量有助于提升肠道菌群的多样性并促进有益微生物代谢产物的生成,而较低的饱和脂肪含量则有助于减少全身性炎症。
植物营养素在调节纤维肌痛症相关病理机制中的作用
编辑
doi.org/10.3390/medicina61122211
此外,维生素 C 和 E、类胡萝卜素以及多酚等抗氧化剂能够减轻氧化应激,从而帮助纤维肌痛症患者改善代谢与免疫功能平衡。
在一项纳入 18 名纤维肌痛患者的非随机对照试验中,为期三个月的纯素食饮食干预显著改善了患者的疼痛程度、关节僵硬感、睡眠质量以及整体健康状况。
同样,一项针对纤维肌痛患者饮食干预措施的系统性综述也涵盖了多项临床研究,结果表明包括素食在内的多种饮食方式都能改善患者的疼痛、疲劳感、生活质量和心理状态等指标,但该类研究的整体证据质量被认为较低。
总体而言,植物性饮食干预似乎对纤维肌痛的治疗具有潜在益处,不过仍需更多设计严谨的研究来明确其长期疗效及作用机制。
低 FODMAP(可发酵寡糖、双糖、单糖及多元醇)饮食
低 FODMAP 饮食最初主要用于改善肠易激综合征相关症状,其核心是减少一类在小肠中吸收不完全、容易在肠道内发酵的短链碳水化合物。由于不少纤维肌痛患者同时存在腹胀、腹痛、排便异常等胃肠道问题,因此,这种饮食方式也逐渐受到纤维肌痛研究领域的关注。
目前认为,减少 FODMAP 的摄入可能首先改善患者的胃肠道症状,并通过肠道-大脑轴等途径间接影响疼痛、疲劳和整体生活状态。
编辑
初步研究显示,低 FODMAP 饮食干预不仅可改善纤维肌痛患者的胃肠道症状,还能提升其日常功能表现与生活质量。不过,仍需更多大规模研究来验证这些发现。
需要注意的是,低 FODMAP 饮食并不适合长期严格限制。由于它会减少多类食物的摄入,如果缺乏专业指导,可能降低饮食多样性,并增加营养摄入不足的风险。
因此,更合理的做法是在专业营养人员指导下短期实施,在症状改善后逐步重新引入不同食物,观察哪些食物容易诱发不适,最终建立更适合个人的长期饮食模式。
排除饮食与食物敏感性
纤维肌痛患者常常报告在摄入某些食物后会出现症状加重的情况,这促使人们越来越关注在纤维肌痛管理中运用排除性饮食疗法。
观察性研究显示,许多纤维肌痛患者在确诊后会改变自己的饮食习惯,通常会避免食用麸质和乳糖等物质,以此来减轻症状的严重程度。
多项临床研究评估了针对纤维肌痛症患者的各种饮食干预措施,包括无麸质饮食和低 FODMAP 饮食。一项系统评价表明,这些饮食方案能够改善疼痛、疲劳及睡眠障碍等症状。
注:不同研究在干预方式、样本量和评价指标上差异较大,因此目前整体证据仍然有限。
这也意味着,排除性饮食并不适合所有纤维肌痛患者,更不建议在没有明确原因的情况下长期大量限制食物。哪些人更容易获益、应该排除哪些食物,以及长期效果如何,目前仍需要更多高质量研究进一步明确。
生酮饮食
生酮饮食通过大幅减少碳水化合物摄入,使机体进入营养性酮症状态,并产生包括β-羟基丁酸在内的多种酮体。除了作为替代能源外,β-羟基丁酸还可能参与炎症调节,例如抑制 NLRP3 炎性小体的活化,从而减少部分促炎细胞因子的释放。
编辑
目前,生酮饮食在纤维肌痛中的研究仍处于较早阶段。一项关于极低热量生酮饮食的初步研究发现,部分患者在干预后疾病严重程度、生活质量、情绪状态和睡眠质量有所改善,而且这些变化并不完全依赖于体重下降。这提示,酮症本身可能通过代谢或神经生物学途径影响纤维肌痛相关症状。
不过,现有研究数量较少、样本量有限,因此还不能据此认为生酮饮食已经被证实能够有效治疗纤维肌痛。此外,生酮饮食限制性较强,长期坚持并不容易。如果饮食搭配不合理,还可能降低食物多样性并增加部分营养素摄入不足的风险。
虽然现有短期研究提示其耐受性总体尚可,但在纤维肌痛患者中的长期安全性、实际效果以及可持续性仍需要更多高质量研究进一步明确。
多酚与抗氧化剂
浆果、茶、咖啡、巧克力、橄榄油等食物富含多酚类物质。
这类成分具有一定的抗氧化和抗炎作用,能够帮助清除过量活性氧、减轻氧化应激,而氧化应激正是纤维肌痛可能涉及的重要病理机制之一。
编辑
此外,多酚还可能通过影响小胶质细胞活性以及神经-免疫相互作用,参与神经炎症和疼痛敏感性的调节。因此,从机制上看,富含多酚的饮食可能对纤维肌痛患者具有一定的辅助价值。
除了从食物中获取多酚外,维生素 C、维生素 E 和 N-乙酰半胱氨酸等抗氧化成分也受到一定关注。这些物质能够参与机体抗氧化防御,例如帮助维持谷胱甘肽等抗氧化系统的功能,从而减轻活性氧积累带来的氧化损伤。
不过,这类干预的实际效果可能因人而异。多酚和其他抗氧化成分在人体内的吸收、生物利用度以及肠道菌群对其代谢方式都存在差异,再加上个体自身代谢状态不同,因此并不是所有患者都会获得相同的效果。
总体来看,多酚和抗氧化营养素更适合作为纤维肌痛综合管理中的辅助干预方向,其具体疗效仍需要更多高质量研究进一步明确。
辅酶 Q10(CoQ10)
辅酶 Q10 通过促进呼吸链中的电子传递,对线粒体的能量生成起着关键作用,进而有助于 ATP 的合成。此外,辅酶 Q10 还具有很强的抗氧化性能,能够帮助减少活性氧和氧化应激,而这两者都与纤维肌痛症的病理生理过程密切相关。
编辑
在一项随机双盲安慰剂对照试验中,每日摄入 300 毫克 CoQ10 并持续 40 天,可显著减轻与纤维肌痛相关的症状,包括疼痛、疲劳以及压痛点,同时还能改善线粒体功能相关指标及炎症生物标志物水平。
此前采用相同剂量进行长达三个月的临床观察也发现临床症状有所改善,这表明在短期至中期内使用 CoQ10 可能具有治疗作用。不过,最佳治疗时长以及长期疗效与安全性仍不确定,需通过更大规模的临床试验来进一步验证。
镁
镁补充剂在缓解纤维肌痛患者的疼痛与压力方面显示出潜在的益处。
一项随机双盲临床试验表明,服用镁补充剂后,患者的疼痛程度显著降低,压力水平也有所改善。不过,目前不同研究得到的结果并不完全一致,而且患者的基础镁水平、压力程度、镁制剂种类以及补充剂量等因素,都可能影响最终效果。
因此,现阶段更适合将镁视为纤维肌痛综合管理中的一种潜在辅助干预,其适用人群、最佳剂量以及不同镁制剂之间的差异,仍需要更多高质量研究进一步明确。
中草药
✦肝郁气滞证
【症状】
肌肉走窜胀痛,焦虑易怒,胸胁胀闷,寐差多梦,或脘闷嗳气,腹痛腹泻,不思饮食,疲乏无力,大便不调,或疼痛夜甚,胸胁刺痛,月经不调,经色紫暗有块;舌暗淡,舌苔白或腻,脉弦细。
◆【相关中药】
柴胡、黄芩、当归、白芍、川芎、白术、茯苓、半夏、防风、威灵仙、元胡、枳壳、陈皮、香附、元胡索、郁金、桂枝等,如兼气滞血瘀,则酌情增加桃仁、红花、川牛膝、乳香、没药等。
✦ 寒湿痹阻证
【症状】
肌肉酸胀、疼痛、僵硬,四肢重着无力,每遇寒冷痛,遇温痛减,舌淡苔白腻,脉沉细。
◆【相关中药】
附子、当归、黄芪、羌活、独活、防风、防己、细辛、桂枝、蜈蚣等。
✦ 痰热扰心证
【症状】
肌肉疼痛、拒按,惊悸不安,口苦心烦,头痛失眠,渴喜冷饮,性情急躁,反复梦魇,恶心纳呆,舌质红,苔黄腻,脉弦滑或弦滑数。
◆【相关中药】
半夏、竹茹、枳实、橘皮、茯苓、胆南星、黄芩、龙骨、牡蛎、穿山龙、忍冬藤、地龙等。
✦ 肝肾不足证
【症状】
肌肉酸痛、无力,腰膝疲软,劳累加重,筋缩,手足不遂;或畏寒肢冷,尿频清长,夜尿增多;或肢体麻木,失眠健忘,月经量少;舌淡苔白,脉沉或弱。
◆【相关中药】
熟地、山药、山茱萸、菟丝子、鹿角胶、杜伸、牛膝、党参、当归、川芎、茯苓、白芍、桂枝、秦艽、防风、细辛、木瓜、伸筋草、乌梢蛇等;偏于阴虚者,加龟板、枸杞子等;偏于阳虚者,加制附子、肉桂等。
以上资料来自《中国纤维肌痛综合征诊疗指南》DOI: 10.3760/cma.j.cn112138-20220602-00426. 注意中医用药需结合患者具体症状、证候及个体情况进行辨证施治,不建议自行照方服用,具体用药请咨询专业医师。
运 动
根据中华中医医学会2023年发出的纤维肌痛的诊疗指南,其特别强调推荐纤维肌痛患者应进行合理的运动锻炼,首选单一的运动形式,根据患者健康情况及个人喜好可采取有氧运动、力量训练、传统功法(太极拳、八段锦、六字诀、五禽戏)、瑜伽、拉伸运动、水中运动;疗程至少3个月。
编辑
此外,我们查询文件也发现一项纳入37篇文献的系统性综述显示,有氧运动、力量训练、功法、太极、瑜伽、拉伸运动、水中运动(如泳池训练、水疗法或水运动疗法)等单一运动形式可明显改善患者的躯体疼痛、认知障碍和生活质量,抑郁、焦虑和睡眠症状得到轻度和中度改善。此外,力量训练、功法、有氧运动均可缓解疲劳。
一项纳入13篇RCT的meta分析显示,与对照组相比,练习太极拳、八段锦、六字诀、五禽戏等功法(中位练习时长为60min/次,中位疗程为12周)4-7周可改善患者的疼痛、疲劳、抑郁、睡眠障碍和生活质量,对疼痛、生活质量和睡眠质量的疗效可维持至24-52周。
为保证疗效,推荐运动锻炼的疗程不应短于3个月。
运动+心里干预
该指南还推荐对有接受更多非药物疗法治疗意愿的纤维肌痛患者,在已有运动锻炼的基础上,可结合患者的具体情况制定个体化方案,选择再联合另一种运动疗法或心理治疗进行干预。
一项纳入21篇RCT(n=1253)的meta分析证实,联合运动(包括至少两种:有氧运动、力量训练和灵敏性训练)可以改善疼痛、僵硬症状以及FM相关生活质量、疲劳,并提高躯体功能,其疗效可持续6-52周,甚至更久。
一项纳入15篇研究(n=1751)的网状meta分析证实,运动联合心理治疗(至少一种运动疗法联合至少一种心理疗法)在改善疼痛和生活质量方面显示出了一定疗效。
编辑
对以疼痛为主要表现的FMS患者,推荐行针刺治疗,亦可尝试采用引导想象与催眠治疗、经颅直流电/磁刺激、按摩疗法进行治疗。
一项纳入12篇研究(n=824)的meta分析显示,接受针刺治疗(20-30min每次,共1-28次)的患者疼痛和生活质量的改善程度均显著好于对照组,且疗效可以维持至8-48周。
一项纳入7篇研究(n=387)的meta分析证实,接受为期4-26周(累计治疗时长2-8h)的引导想象/催眠干预的患者疼痛VAS改善≥50%达标率和心理压力的改善均显著好于对照组;此外,对疲劳、疼痛、睡眠障碍都有一定作用,且可以维持到治疗结束后12周。
睡眠管理与药物支持
睡眠管理:重建夜晚修复系统
失眠或非恢复性睡眠是FMS最常见的症状之一。规律的作息习惯、睡前避免强光刺激、减少咖啡因摄入是基础干预。
对于中重度睡眠障碍者,在医生指导下可使用助眠药物进行短期干预,以打破“疼痛-失眠-更痛”的恶性循环。
药物治疗:针对疼痛机制的精准干预
虽然纤维肌痛患者不推荐长期依赖止痛药,但特定药物能有效调节中枢神经系统的异常状态:
需要强调的是,药物治疗应个体化,用药前需咨询医师。
纤维肌痛是一种多维度、多系统交织的、需要长期管理的慢性疼痛疾病,既不能简单归为“心理问题”,也不能视为“肌肉病”。它是一种中枢痛觉处理异常导致的“功能性疾病”,需要全社会更多理解与支持。
其干预通常需要饮食、运动、睡眠管理以及生活方式调整、药物等多种方式共同参与。相比之下,饮食干预是一种风险相对较低的策略。改善整体饮食质量、减少促炎饮食因素,并根据个体情况选择合适的营养干预,可能有助于缓解纤维肌痛患者部分症状并改善生活质量。
纤维肌痛并不是“想太多”或“忍一忍就会过去”的问题。持续的疼痛、疲劳、睡眠障碍和认知困扰都是真实存在的。患者及家属需要建立正确的疾病认知,并在专业医生指导下,根据自身症状制定个体化的长期管理方案。
未来,随着对“肠道菌群-免疫-神经系统”相互作用认识的不断深入,肠道菌群检测以及基于菌群特征的个体化饮食干预,可能为纤维肌痛的精准管理提供新的思路。
如果你身边有人常说
“我浑身都疼”“真的好累”
别急着说TA“太敏感”
理解、共情、科学治疗
才是我们真正该给的回应
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献:
中华医学会风湿病学分会。纤维肌痛综合症诊断和治疗指南。中华风湿病学杂志,2011,15(8):559-561。
Wolfe F,Clauw DJ,Fitzcharles MA等。用于临床和流行病学研究的纤维肌痛标准和严重程度量表:ACR纤维肌痛初步诊断标准的修改。风湿病杂志,2011,38(6):1113-1122。
Priya D, Shetty P, Shetty G B (July 10, 2026) Anti-inflammatory Diets for Chronic Pain Disorders With a Focus on Fibromyalgia: A Narrative Review. Cureus 18(7): e112395.
Bair MJ, Krebs EE (2020) Fibromyalgia. Ann Intern Med 172:ITC33.
Sarzi-Puttini P, Giorgi V, Marotto D, Atzeni F (2020) Fibromyalgia: an update on clinical characteristics, aetiopathogenesis and treatment. Nat Rev Rheumatol 16:645–660.
中华中医药学会风湿病分会;海峡两岸医药卫生交流协会风湿免疫病学专业委员会纤维肌痛综合征中西医研究学组;首都中西医结合风湿免疫病研究所 (2023) 中国纤维肌痛综合征诊疗指南. 中华内科杂志 62:129–146.
(2020) 纤维肌痛症发病机制的研究进展. 同济大学学报(医学版) 518–522
Macfarlane GJ, Kronisch C, Dean LE, et al (2017) EULAR revised recommendations for the management of fibromyalgia. Ann Rheum Dis 76:318–328.
Bhargava J, Goldin J: Fibromyalgia. StatPearls [Internet]. StatPearls Publishing, Treasure Island (FL); 2025.
Marques AP, Santo AS, Berssaneti AA, Matsutani LA, Yuan SL: Prevalence of fibromyalgia: literature review update. Rev Bras Reumatol Engl Ed. 2017, 57:356-63.
Misra DP, Sharma A, Dharmanand BG, Chandrashekara S: The epidemiology of rheumatic diseases in India. Indian J Rheumatol. 2024, 19:54-61.
Belviranlı M, Okudan N, Sezer T. Coenzyme Q10 improves redox homeostasis, mitochondrial biogenesis, and irisin signaling in fast- and slow-twitch muscle fibers in a reserpine-induced fibromyalgia-like myalgia model. Life Sci. 2026 Jun 1;394:124366.
Palma-Ordóñez JF, Moreno-Fernández AM, Ramírez-Tejero JA, Durán-González E, Martínez-Lara A, Cotán D. Implication of intestinal microbiota in the etiopathogenesis of fibromyalgia: A systematic review. Int J Rheum Dis. 2024 Jan;27(1):e15021.
García-Domínguez M: A comprehensive analysis of fibromyalgia and the role of the endogenous opioid system. Biomedicines. 2025, 13:10165.
谷禾健康
慢性疼痛已成为困扰全球五分之一成年人的重大公共卫生挑战,表现为一种复杂的、多维度失调的病理状态,深刻影响患者的生理、心理乃至社交。
这一持续3个月或更长时间的疼痛现象,呈现出锐痛、刺痛、灼烧感、酸痛等多样化特征,可能局限于特定部位或广泛分布全身,因其易于复发的特性,给个人、家庭及整个社会带来了沉重的经济与医疗负担。
尽管现代医学在疼痛管理方面已取得一定进展,但现有的治疗策略——如阿片类药物、非甾体抗炎药(NSAIDs)、抗惊厥药及抗抑郁药等,往往伴随着疗效有限、副作用显著(如成瘾、胃肠道损伤、中枢神经系统抑制等)以及个体差异巨大等问题。
更重要的是,这些疗法多以对症处理为主,难以触及慢性疼痛复杂病理生理机制的核心——包括外周敏化、中枢敏化、神经炎症、神经-免疫失衡等关键病理过程,导致许多患者的临床需求远未得到满足。因此,探索慢性疼痛发生发展的深层机制,并据此开发更为精准、高效且安全的创新性治疗策略,已成为疼痛研究领域亟待突破的关键瓶颈。
近年来飞速发展的肠道菌群研究为我们理解和干预慢性疼痛提供了一个新视角。肠道菌群通过”微生物群-肠-脑轴”这一复杂的双向通讯网络,影响着中枢神经系统的功能,包括情绪、认知乃至疼痛感知。越来越多的证据表明,肠道菌群失调与多种慢性疾病的发生发展密切相关,特别是在神经病理性疼痛、炎症性疼痛、内脏痛等多种慢性疼痛模型中,菌群结构与功能的特征性改变及其与疼痛表型的密切联系正以前所未有的速度向纵深拓展。
本文旨在系统阐述慢性疼痛的核心病理特征,并概述肠道菌群失调对宿主生理的广泛影响;深入剖析微生物群-肠-脑轴在疼痛感知与调节中的多通路作用,包括神经、免疫、内分泌及关键代谢产物(如短链脂肪酸、次级胆汁酸、色氨酸代谢物)的介导机制;同时整合最新的临床前与临床研究证据,展示在不同慢性疼痛模型中肠道菌群的特征性改变;评估了当前基于肠道菌群调控的慢性疼痛干预策略,为慢性疼痛的基础研究与临床转化提供参考。
慢性疼痛持续3个月或更长时间,可能持续性的,也可能时好时坏地反复发作。它可能影响人们到无法工作、正常进食、参与体育活动或享受生活的程度。
慢性疼痛有哪些症状?
慢性疼痛有:锐痛、刺痛、灼烧感、搏动性疼痛、酸痛、僵硬感等。
慢性疼痛可能局限于特定部位(背部、颈部、关节)或广泛分布全身。
患有慢性疼痛的人常常也会感到疲倦,睡眠问题,食欲不振和/或对食物失去兴趣,以及体重减轻。
经典闭环:疼痛、抑郁、失眠
疼痛可能会让人专注于疼痛,出现抑郁和易怒,抑郁和易怒通常会导致失眠和疲劳,进而导致更多的易怒、抑郁和疼痛。
慢性疼痛的原因?
一些已知的慢性疼痛原因包括:
这包括关节、肌肉和骨骼的广泛疼痛,通常表现为隐痛或酸痛。
关节炎引起的疼痛也发生在关节中,通常表现为隐痛。这是关节炎对关节造成的损伤所导致的。
腹痛和痉挛可能由于 IBS 发生,这是由于肠道和大脑之间的联系。肠易激综合征引起的慢性疼痛通常包括腹部痉挛和剧烈疼痛,甚至背痛。
持续的下体疼痛可能来自多种原因,包括先前的损伤或特定状况,如坐骨神经痛或椎间盘突出。
虽然头痛和偏头痛不同,但你可能会因为其中任何一种而出现慢性疼痛。如果头痛或偏头痛每月出现 15 天或更多天,则被视为慢性。
这种状况会影响盆腔和腹部区域,并在月经周期期间、之前或之后引起慢性盆腔疼痛。它还可能导致消化问题和一般的胃痛。
患有慢性疲劳综合征的人可能会经历身体疼痛、头痛和喉咙痛,伴随极度疲劳、疲劳和睡眠障碍等症状。
还有很多其他例如癌症等疾病,总的来说,包括神经性的(神经损伤或刺激)、伤害性的(组织损伤、受伤、手术等)、肌肉骨骼性的(韧带、肌腱、肌肉、关节、骨骼等)、炎症性的(免疫系统对感染或受伤的反应)、心因性的(心理状况引起的疼痛)、机械性的(受到物理压力)等。
为什么传统的对症治疗往往收效甚微,甚至可能带来新的问题?要回答这些问题,我们需要深入探讨慢性疼痛的病理生理学基础。
慢性疼痛的本质远非简单的伤害性感受信号的持续传递,而是一个涉及外周及中枢神经系统发生复杂可塑性改变的病理过程。
慢性疼痛的核心特征在于,神经系统对伤害性及非伤害性刺激的反应模式发生了持久性的、异常的增强和放大,使得疼痛感知与初始损伤或刺激的程度和范围不再匹配,甚至在原始致伤因素消失后依然存在。
理解这些核心机制,是后续探讨肠道菌群如何影响疼痛的关键。
外周敏化与中枢敏化:疼痛信号的恶性循环
☆ 外周敏化
外周敏化(Peripheral Sensitization)是指在外周组织损伤或炎症部位,伤害性感受器(痛觉感受器)的兴奋性异常增高的现象。
组织损伤后释放的多种炎症介质,如缓激肽、前列腺素(PGE₂)、TNF-α、IL-1β、神经生长因子(NGF)等,可以直接或间接地作用于感觉神经末梢上的特异性受体和离子通道(如瞬时受体电位香草酸受体1亚型 TRPV1、酸敏感离子通道 ASIC等)。
这些介质通过激活下游信号通路(如PKA、PKC、MAPK等),导致离子通道磷酸化、表达上调或膜转运增加,从而降低伤害性感受器的激活阈值,并增强其对刺激的反应强度。
其结果是,即使是轻微的刺激也会引发强烈的疼痛感(痛觉过敏,hyperalgesia),甚至非伤害性刺激(如轻触)也能诱发疼痛(异常疼痛,allodynia)。
☆ 中枢敏化——慢性疼痛持续化和扩散的关键机制
中枢敏化(Central Sensitization)指脊髓背角和更高级中枢(如丘脑、杏仁核、前扣带皮层等)神经元对伤害性信号的反应性增强和持久性增高。其形成涉及复杂的神经元可塑性改变:
长期或强烈的伤害性输入,导致初级传入神经元末梢释放过量的兴奋性神经递质,如谷氨酸和P物质。谷氨酸激活突触后膜上的AMPA受体和NMDA受体(N-甲基-D-天冬氨酸受体)。特别是NMDA受体的激活,允许Ca²⁺内流,触发一系列下游信号级联反应,导致突触后神经元兴奋性增强,出现wind-up效应和长时程增强(LTP)。
中枢敏化过程中,脊髓背角的抑制性神经元(如释放GABA或甘氨酸的神经元)功能减弱或凋亡,导致对兴奋性信号的抑制不足,进一步加剧了疼痛信号的放大。
来自脑干(如中缝大核、蓝斑核)的下行抑制通路,通过释放5-羟色胺(5-HT)和去甲肾上腺素(NE)等神经递质,对脊髓水平的疼痛传递发挥重要的抑制作用。在慢性疼痛状态下,这些下行抑制通路的功能往往受损,导致疼痛信号的“闸门”失控。
长期的中枢敏化可导致神经元内基因表达发生持久性改变,合成更多促进疼痛的受体、离子通道和神经递质,从而巩固和维持疼痛状态。
神经炎症:疼痛的“催化剂”与“放大器”
神经炎症是指在中枢神经系统(CNS)内发生的炎症反应,以神经胶质细胞(主要是小胶质细胞和星形胶质细胞)的激活为核心特征。在慢性疼痛状态下,神经炎症不仅参与疼痛的启动,更在疼痛的维持和慢性化中扮演关键角色。
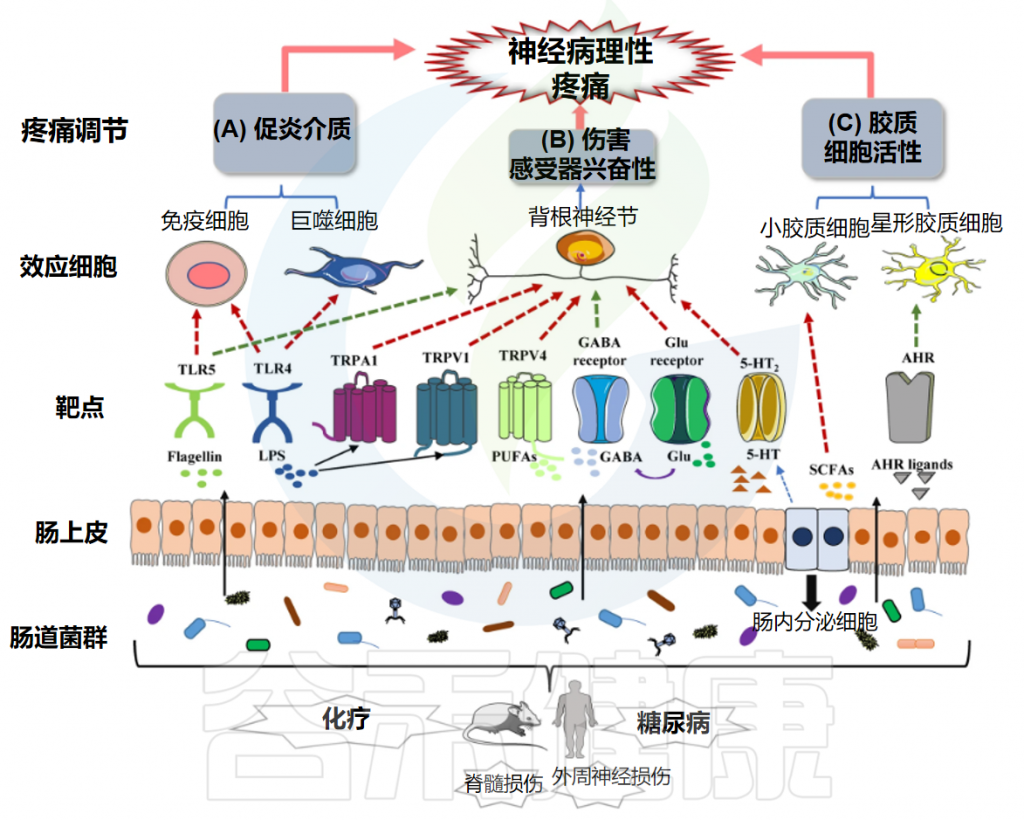
作为中枢神经系统中的主要免疫细胞,小胶质细胞(Microglia)在接收到外周损伤信号或神经元异常活动信号后被迅速激活。激活的小胶质细胞形态改变,并大量释放促炎细胞因子(如TNF-α, IL-1β, IL-6)、趋化因子(如CCL2, CXCL1)以及活性氧(ROS)等。这些物质直接增强神经元的兴奋性,促进中枢敏化的形成。
星形胶质细胞(Astrocytes)的激活通常稍晚于小胶质细胞,但在疼痛的慢性化维持中作用更为持久。激活的星形胶质细胞同样释放多种促炎介质,并且可以通过减少对谷氨酸等兴奋性神经递质的清除、下调GABA能抑制以及形成胶质瘢痕等方式,进一步加剧神经元兴奋性的异常和疼痛的持续。
神经免疫交互作用:复杂的对话网络
慢性疼痛的持续化并非单纯的神经系统事件,而是神经系统与免疫系统之间复杂交互作用的结果。
外周免疫细胞(如巨噬细胞、T淋巴细胞)可以释放细胞因子和趋化因子,这些因子不仅作用于外周神经元,还可以通过血脑屏障(在某些病理状态下其通透性会增加)或迷走神经等途径影响中枢神经胶质细胞和神经元的活性。
神经系统也可以通过释放神经递质和神经肽来调节免疫细胞的功能。这种双向的神经免疫对话失衡,是导致炎症反应迁延不愈、疼痛信号持续放大的重要原因。例如,某些T细胞亚群(如Th1, Th17)及其分泌的细胞因子被认为促进疼痛,而调节性T细胞(Treg)则可能发挥疼痛缓解作用。
关键分子与信号通路:疼痛机制的核心节点
上述病理生理过程的实现,依赖于一系列关键分子和信号通路的参与。简要了解这些节点,有助于后续理解肠道菌群如何通过影响这些靶点来调控疼痛:
– TRP通道家族(TRPV1, TRPA1, TRPM8等)参与温度、化学和机械刺激的感受;
– 电压门控钠离子通道(Nav1.7, Nav1.8, Nav1.9等)负责动作电位的产生和传导;
– P2X受体(特别是P2X3, P2X4, P2X7)是ATP的受体,参与神经元和胶质细胞的激活。
NMDA受体是中枢敏化的核心;AMPA受体介导快速兴奋性突触传递;GABA受体和甘氨酸受体介导抑制性传递。
TNF-α、IL-1β、IL-6等促炎细胞因子及其相应的受体在神经炎症和神经元敏化中起关键作用。
如MAPK通路(ERK, JNK, p38)、NF-κB通路、PI3K-Akt通路等,这些通路被上游受体激活后,调控基因表达,影响神经元功能和炎症反应。
慢性疼痛的病理生理机制是一个多层面、多环节、动态演变的复杂过程,涉及外周与中枢神经系统的敏化、神经炎症的驱动以及神经-免疫的失衡互动。正是这些核心机制的异常,构成了慢性疼痛难以治愈的根源。
肠道菌群在健康与疾病中的作用日益受到重视,其与中枢神经系统功能及相关疾病的复杂联系,包括慢性疼痛,正通过“微生物群-脑-肠轴”(Microbiota-Gut-Brain Axis, MGBA)这一概念得到系统性的阐释。
微生物群-脑-肠轴是一个复杂的、双向的通讯网络,整合了神经、免疫、内分泌、代谢等多个信号通路,允许肠道微生物与大脑之间进行持续的对话。肠道菌群的稳态或失调,能够深刻影响这一轴的功能,从而在慢性疼痛的发生、发展和维持中扮演关键角色。
微生物群-脑-肠轴:疼痛调控的关键枢纽
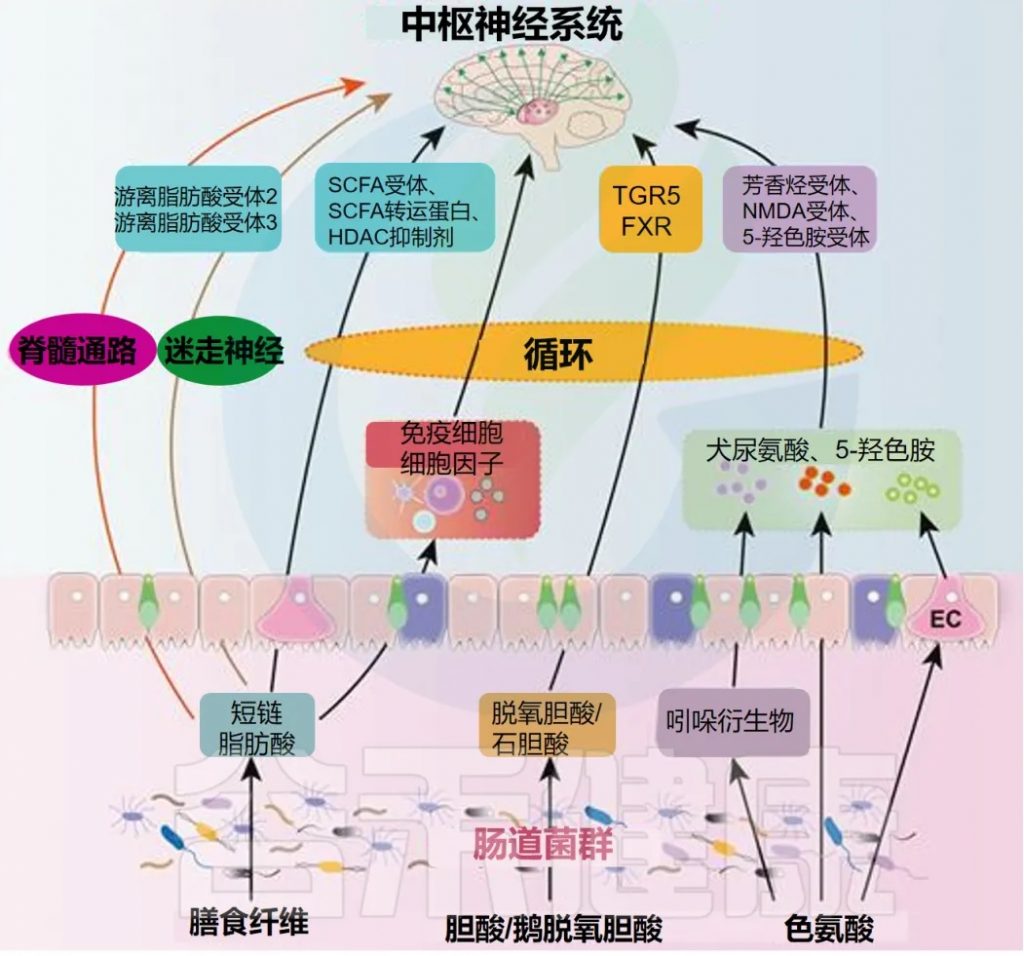
脑-肠-菌轴构成了肠道微生物影响宿主疼痛感知和调控的主要生理基础。其主要通讯途径包括:
▼
神经通路:迷走神经的桥梁作用
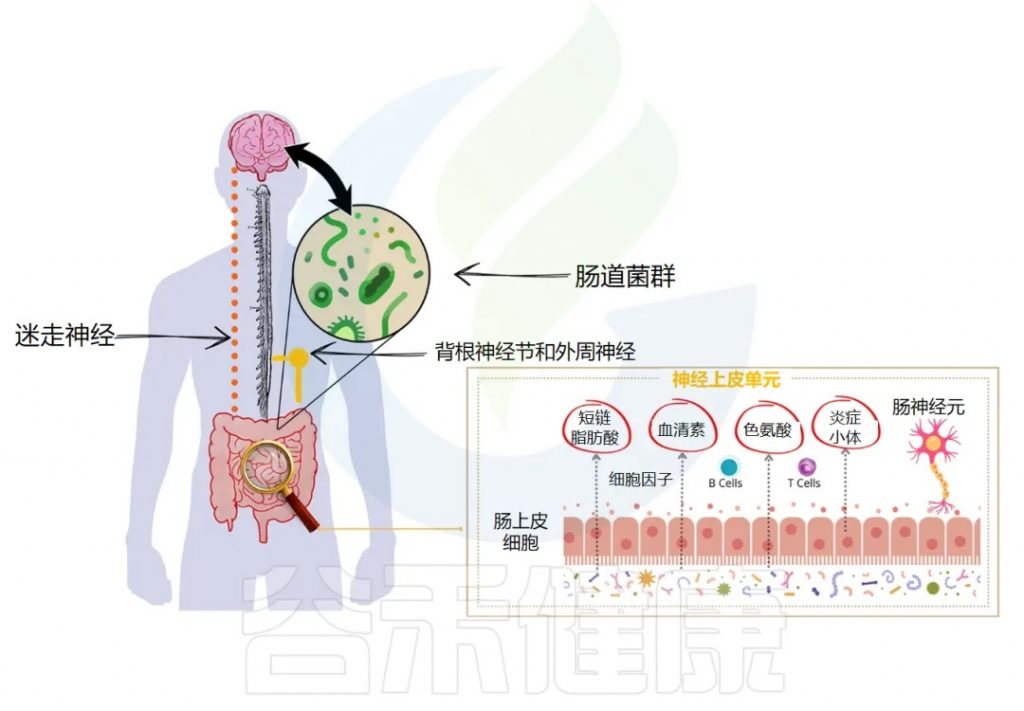
迷走神经(Vagus Nerve),作为第十对脑神经,是连接脑干与胸腹腔脏器之间最长、分布最广的神经通路,构成了微生物群-脑-肠轴中最为直接和关键的神经通讯链路。其在拉丁语中意为“流浪者”,形象地描述了它在体内广泛的行程。
迷走神经具有双向传导功能,但其传入纤维(afferent fibers)占据了绝大多数(约80-90%),这意味着它主要负责将来自内脏(包括胃肠道)的各种生理和病理信号传递给中枢神经系统。
这些信号包括机械牵张(如肠道扩张)、化学刺激(如营养物质、pH变化、毒素),以及至关重要的来自肠道菌群及其代谢产物的信号。
1、迷走神经传入信号的感知与传递
肠道菌群并不直接与大脑进行物理接触,但它们产生的海量代谢物以及对肠道内环境的塑造,能够被迷走神经末梢灵敏地感知。这一感知过程可以是直接的,也更多是通过间接途径实现:
——间接激活:肠道内分泌细胞的关键中介作用
肠道内分泌细胞(Enteroendocrine Cells, EECs)是散在于肠道上皮细胞间的特化感觉细胞,它们能够直接感受肠腔内的化学环境变化,包括菌群代谢产物的刺激。当菌群代谢产物,特别是短链脂肪酸(SCFAs),如乙酸、丙酸和丁酸,作用于EECs表面的特异性G蛋白偶联受体(如GPR41/FFAR3, GPR43/FFAR2)时,会触发EECs释放多种神经活性物质。
——直接激活(可能性较低但存在)
这些由菌群活动引发的、经由迷走神经传入的信号,首先汇聚于脑干的孤束核(Nucleus of the Solitary Tract, NTS)。NTS是内脏感觉信息传入中枢的第一个整合处理站。从NTS开始,这些信号进一步投射到更高级的脑区,包括:
通过这一系列复杂的神经投射,肠道菌群的状态能够深刻影响宿主对疼痛的感知强度、情感反应以及认知评价。
2、 迷走神经在菌群介导的镇痛及行为调节中的关键作用——来自迷走神经切断术的证据
迷走神经的完整性对于许多肠道菌群介导的生理效应至关重要,尤其是在情绪和疼痛调节方面。迷走神经切断术(Vagotomy),特别是保留肝支和胃支的膈下迷走神经切断术(Surgical Subdiaphragmatic Vagotomy, SDG),已成为研究迷走神经在菌群-脑轴中作用的关键实验手段。
益生菌的镇痛与抗焦虑/抑郁效应依赖于迷走神经
研究表明,迷走神经的完整性对于某些菌群介导的镇痛效应至关重要;迷走神经切断术可以阻断特定益生菌的抗焦虑和抗抑郁作用,并可能影响其对内脏痛的调节。
例如,经典研究表明,益生菌鼠李糖乳杆菌(Lactobacillus rhamnosus JB-1)能够通过迷走神经依赖的机制减轻小鼠的焦虑和抑郁样行为,并改变中枢GABA受体的表达。当迷走神经被切断后,这些有益效应便消失了。
类似地,一些益生菌在动物模型中能够缓解内脏疼痛。但是,当研究者切断迷走神经后,这种镇痛效果会消失或明显减弱。这有力证明了迷走神经的重要作用,它是有益菌株信号传递到大脑的必要通路,也是产生镇痛效应的关键环节。
3. 迷走神经传出信号对肠道和菌群的反向调控
微生物群-肠-脑轴的通讯是双向的。大脑不仅接收来自肠道和菌群的信号,也通过迷走神经的传出纤维(efferent fibers)主动调节肠道功能,进而间接影响肠道菌群的生态位和组成。
– 调节肠道蠕动和分泌
迷走神经传出信号是胃肠道运动(如胃排空、小肠蠕动)和消化液分泌(如胃酸、胰酶)的主要神经调节器。这些生理活动直接影响食糜在肠道内的停留时间、营养物质的消化吸收效率以及肠道内的物理化学环境(如pH值),从而为不同类型的微生物创造或改变其生存和繁殖的生态位。
– 维持肠道屏障完整性
迷走神经的传出信号,特别是通过胆碱能抗炎通路(Cholinergic Anti-inflammatory Pathway, CAP),在维持肠道屏障功能和控制局部炎症中发挥重要作用。该通路涉及迷走神经释放乙酰胆碱(ACh),ACh作用于肠道黏膜免疫细胞(如巨噬细胞)表面的α7烟碱型乙酰胆碱受体(α7nAChR),从而抑制促炎细胞因子的产生,减轻炎症反应,保护肠道屏障。一个健康的肠道屏障对于限制有害菌及其产物(如LPS)的易位至关重要。
– 影响黏液层
迷走神经可能参与调节肠道黏液层厚度和成分,黏液层是肠道上皮的第一道物理和化学屏障,也是特定菌群(如Akkermansia muciniphila)的栖息地和营养来源。
通过这些传出途径,中枢神经系统的状态(如应激、情绪)可以通过迷走神经影响肠道生理和菌群稳态,形成一个完整的反馈回路。
▼
免疫通路:菌群塑造的全身性免疫网络与疼痛
肠道不仅是消化吸收的主要场所,更是人体最大、最复杂的免疫器官,其广阔的黏膜表面(约200-300平方米)直接暴露于数以万亿计的共生微生物及其代谢产物之中。
这种持续的、动态的相互作用,使得肠道菌群在宿主免疫系统的发育、成熟、校准和功能调节中扮演着无可替代的核心角色。它们如同免疫系统的“陪练员”和“调校师”,通过与肠道相关淋巴组织——包括派尔集合淋巴结(Peyer’s patches)、肠系膜淋巴结(mesenteric lymph nodes)以及弥散在肠黏膜固有层和上皮内的免疫细胞的持续对话,塑造着宿主的先天性和适应性免疫反应,其影响深远,不仅限于肠道局部,更能波及全身,包括对疼痛感知和慢性化的调控。
1、菌群介导的免疫细胞分化与平衡:塑造敌我识别与炎症刹车
肠道菌群通过其组成成分和代谢产物,能够精准地诱导和调控不同免疫细胞亚群的分化与功能平衡,这对维持免疫稳态、防止过度炎症反应以及有效清除病原体至关重要。当这种平衡被打破时,往往与慢性炎症和疼痛的发生发展相关。
分节丝状菌(Segmented Filamentous Bacteria, SFB)是一种特殊的、能紧密附着于小肠上皮细胞的共生菌。分节丝状菌能有效诱导辅助性T细胞17(Th17)的分化。
Th17细胞以其分泌的标志性细胞因子IL-17以及IL-21、IL-22等而闻名。
IL-17家族(特别是IL-17A和IL-17F)是强效的促炎细胞因子,能够招募中性粒细胞,诱导其他促炎细胞因子(如TNF-α, IL-1β, IL-6)和趋化因子的产生,参与组织炎症和自身免疫性疾病的病理过程。因此,在多种自身免疫性疾病(如类风湿关节炎、多发性硬化)和炎症性疼痛模型中,Th17细胞及其相关通路被认为是驱动炎症和疼痛的关键因素。
SFB的定植虽然在抵抗某些病原体感染中具有保护作用,但其过度激活或在特定遗传背景下,可能导致Th17反应失控,加剧炎症和疼痛。
与Th17细胞的促炎作用相对的是调节性T细胞(Treg),它们是维持免疫耐受和抑制过度免疫反应的关键刹车细胞,主要通过分泌IL-10和TGF-β等抑制性细胞因子,以及细胞接触依赖性机制来发挥作用。
某些梭菌属细菌(如 Clostridium clusters IV和 XIVa,这些是主要的产丁酸菌群)和脆弱拟杆菌(Bacteroides fragilis)及其荚膜多糖A(Polysaccharide A, PSA)则能有效诱导Treg细胞的产生和IL-10的分泌。
这种由特定菌群驱动的Th17/Treg平衡,对于决定机体对炎症刺激的反应强度和持续时间至关重要。菌群失调若导致Th17细胞过度活化而Treg细胞功能不足,则易于引发或加剧慢性炎症性疼痛。
2. 细胞因子网络的调控:菌群失调与慢性低度炎症的“导火索”
肠道菌群稳态的维持对于局部和全身细胞因子网络的平衡至关重要。菌群失调,有益菌减少、潜在致病菌增多、菌群多样性下降,往往伴随着免疫失衡和慢性低度炎症状态的形成。
– 促炎细胞因子的过度产生
菌群失调常常导致TNF-α、IL-1β、IL-6等关键促炎细胞因子的过量产生。这些细胞因子不仅在肠道局部加剧炎症反应、破坏肠道屏障,更关键的是,它们可以释放入血液循环,形成一种全身性的慢性低度炎症背景。这种状态是多种慢性疾病(包括心血管疾病、糖尿病、神经退行性疾病以及慢性疼痛)的共同病理生理基础。
– 抗炎细胞因子的相对不足
菌群失调也可能导致IL-10和TGF-β等关键抗炎细胞因子的产生减少,使得炎症反应难以被有效控制和终止。
– 对疼痛的直接和间接影响
这些循环中的促炎细胞因子能够直接作用于外周伤害性感受器,降低其激活阈值,导致外周敏化。例如,TNF-α和IL-1β能直接激活或敏化TRPV1等痛觉相关离子通道。
同时,它们也能穿过在某些病理状态下通透性增加的血脑屏障(BBB)和血脊髓屏障(BSCB),或通过激活脑血管内皮细胞产生次级信使,作用于中枢神经系统,激活小胶质细胞和星形胶质细胞,诱导神经炎症,促进中枢敏化。
因此,菌群失调介导的细胞因子网络紊乱,是连接肠道与远端疼痛感知的关键免疫学桥梁。
3、微生物相关分子模式与模式识别受体:免疫系统的警报系统
肠道菌群的结构成分,如细菌细胞壁的组分,被称为微生物相关分子模式(MAMPs)。
宿主的先天免疫细胞(如巨噬细胞、树突状细胞)以及一些非免疫细胞(包括肠上皮细胞、神经元和胶质细胞)表面表达着一系列模式识别受体(PRRs),用于识别这些MAMPs并发起适当的免疫应答。
– 关键MAMPs及其识别
– PRR激活与炎症信号通路
当MAMPs与相应的PRRs结合后,会迅速激活下游的信号转导通路,其中最经典的是NF-κB(核因子κB)通路和MAPK(丝裂原活化蛋白激酶)通路。这些通路的激活导致多种促炎基因的转录上调,大量释放炎症介质,包括前述的促炎细胞因子(TNF-α、IL-1β、IL-6)、趋化因子(吸引更多免疫细胞至炎症部位)、黏附分子以及一氧化氮(NO)和前列腺素等。
– 肠道屏障受损与MAMPs易位(肠漏)
在健康的肠道中,完整的肠道屏障(包括物理屏障、化学屏障、免疫屏障)能够有效地将大部分肠道菌群及其MAMPs限制在肠腔内,仅允许少量、受控的MAMPs与免疫系统相互作用以维持免疫张力。
然而,当肠道菌群失调、饮食因素、应激、药物(如NSAIDs)等因素导致肠道屏障功能受损,即出现“肠漏”时,大量的MAMPs(特别是LPS)会从肠腔跨过受损的屏障易位进入血液循环,导致所谓的“代谢性内毒素血症”。
循环中的LPS能够激活全身各处的TLR4,引发持续的、低度的全身性炎症反应,这与胰岛素抵抗、肥胖、非酒精性脂肪肝以及多种慢性疼痛状态(特别是神经病理性疼痛和纤维肌痛)的发生发展密切相关。LPS也可以直接作用于背根神经节(DRG)的感觉神经元和中枢的胶质细胞,增强其对伤害性刺激的反应,促进疼痛的产生和维持。
综上所述,肠道菌群通过塑造免疫细胞的分化平衡(如Th17/Treg平衡)、调控全身细胞因子网络以及通过MAMPs-PRRs相互作用激活先天免疫,构成了影响宿主疼痛感知和慢性化的关键免疫通路。菌群失调导致的免疫失衡和慢性炎症状态,是连接肠道微生态与疼痛病理生理过程的重要桥梁。因此,靶向调节肠道菌群以恢复免疫稳态,已成为开发新型疼痛干预策略的重要方向。
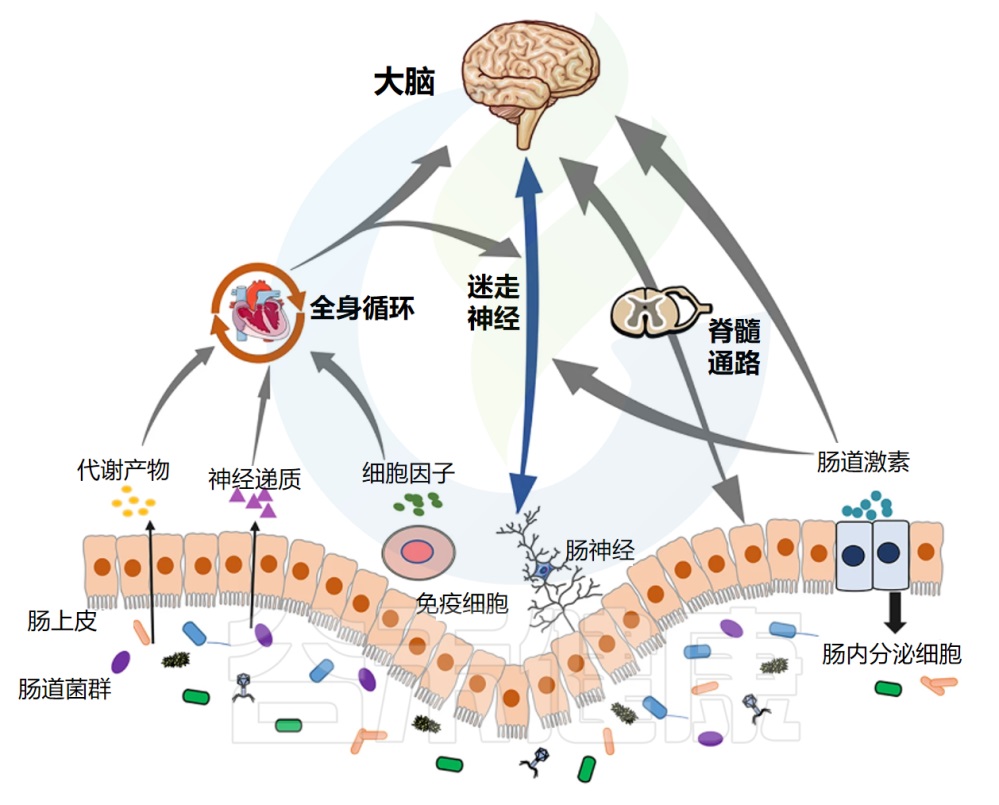
doi: 10.1186/s10194-020-01170-x
▼
内分泌通路:HPA轴的菌群调节与应激疼痛
下丘脑-垂体-肾上腺(HPA)轴是机体最主要的应激反应系统。慢性应激是慢性疼痛发生和恶化的重要风险因素。肠道菌群能够双向调节HPA轴的活性。
无菌动物模型研究显示,缺乏正常菌群的动物对应激表现出异常的HPA轴反应(通常是过度反应),表现为促肾上腺皮质激素释放激素(CRH)和皮质酮水平的升高。早期定植特定菌群可以部分逆转这种异常。
– 菌群代谢产物的影响
SCFAs等菌群代谢产物可以通过影响迷走神经或直接作用于肾上腺等方式,调节HPA轴。
– 肠道屏障与LPS
菌群失调导致的肠漏和LPS易位,可以激活免疫系统,间接刺激HPA轴。
HPA轴的失调,特别是皮质醇节律的紊乱和长期高水平,不仅与抑郁、焦虑等情绪障碍相关,也直接促进疼痛的慢性化。例如,糖皮质激素可以影响神经元的兴奋性和胶质细胞的活性。因此,菌群通过调节HPA轴的稳态,间接影响宿主对疼痛的易感性和疼痛程度。
▼
代谢通路:菌群工厂的杰作与疼痛调控
肠道菌群拥有庞大的酶系统,能够代谢宿主不能消化的膳食成分(如膳食纤维)以及宿主自身产生的物质(如胆汁酸),产生大量具有生物活性的小分子代谢物,这些代谢物是菌群影响宿主生理(包括疼痛)的关键介质。
– 短链脂肪酸(SCFAs)
主要包括乙酸、丙酸、丁酸,是膳食纤维经厌氧菌发酵的主要产物。SCFAs不仅是结肠上皮细胞的主要能源物质,维持肠道屏障的完整性(例如丁酸能促进紧密连接蛋白如occludin和ZO-1的表达),还具有广泛的全身性调节作用:
– 次级胆汁酸
初级胆汁酸(如胆酸CA,鹅去氧胆酸CDCA)在肝脏合成后排入肠道,在肠道菌群(主要是梭菌属)的酶(如7α-脱羟酶)作用下转化为次级胆汁酸,如脱氧胆酸(DCA)和石胆酸(LCA)。这些次级胆汁酸是重要的信号分子,主要通过激活法尼醇X受体(FXR)和G蛋白偶联胆汁酸受体1(TGR5,又称GPBAR1)发挥作用。
– 色氨酸代谢产物
膳食中的必需氨基酸色氨酸在宿主和肠道菌群的共同作用下,可以通过多条途径代谢,产生一系列具有神经活性的分子。
– 脂多糖等微生物相关分子模式(MAMPs)
如前所述,LPS是革兰氏阴性菌外膜的主要成分。在肠道屏障功能受损(“肠漏”)的情况下,LPS会从肠腔易位进入血液循环,形成“代谢性内毒素血症”。
特定慢性疼痛模型中肠道菌群改变的证据
大量临床前和部分临床研究已经揭示了肠道菌群失调与多种慢性疼痛状态之间的密切关联。
神经病理性疼痛
神经病理性疼痛由躯体感觉神经系统的损伤或疾病直接引起。
化疗是治疗癌症的重要手段,但许多化疗药物,如紫杉醇、奥沙利铂、长春新碱、硼替佐米等,常导致严重的剂量限制性副作用——CIPN。
患者表现为肢体远端的麻木、刺痛、烧灼感和痛觉过敏/异常疼痛,严重影响生活质量并可能导致化疗方案的调整甚至中断。
多种化疗药物(如紫杉醇、奥沙利铂)可引起严重的CIPN,其患者和动物模型中均观察到肠道菌群的显著改变,如多样性下降,厚壁菌门/拟杆菌门(F/B)比值改变,特定菌属如Akkermansia muciniphila(常被认为是益生菌)和产丁酸菌(如Faecalibacterium prausnitzii)的丰度下降,而一些潜在致病菌(如某些变形菌门细菌)丰度增加。补充A. muciniphila或其活性成分被证明可以缓解CIPN。
这些经典的神经病理性疼痛动物模型中,也观察到肠道菌群失调,伴随肠道屏障功能受损、LPS水平升高和神经炎症,粪便移植自CCI大鼠可诱导幼稚大鼠产生痛觉过敏。FMT或特定益生菌干预能够改善疼痛行为,并逆转部分菌群和炎症指标。
糖尿病患者常伴有肠道菌群失调,这被认为是糖尿病神经病变发生的风险因素之一。糖尿病患者的菌群失调通常表现为产丁酸菌(如Faecalibacterium prausnitzii, Roseburia)的减少,某些机会致病菌(如肠杆菌科细菌)的增加,以及整体多样性的下降。菌群失调可能通过加剧代谢紊乱、促进全身性炎症和氧化应激来促进糖尿病神经病变的发生。
炎症性疼痛
内脏痛
肠易激综合征(IBS),是最常见的内脏痛相关功能性胃肠病,其患者肠道菌群失调的证据最为充分。表现为菌群多样性降低,F/B比值改变,特定菌属如乳杆菌属和双歧杆菌属的减少,而某些潜在致病菌(如肠杆菌科细菌)的增加。
菌群失调通过多种机制导致IBS的核心症状——腹痛和内脏高敏感性,包括:肠道屏障功能受损、低度免疫激活、5-HT信号通路异常、SCFAs谱改变等。针对IBS的菌群干预(如低FODMAP饮食、特定益生菌、FMT)已成为研究和治疗的热点。
中枢性疼痛综合征
这类疼痛综合征(如纤维肌痛、偏头痛)的病理机制被认为主要涉及中枢神经系统的功能失调,但外周因素也可能参与其中。
宿主遗传背景、性别差异与肠道菌群在疼痛中的交互作用
– 宿主遗传背景
宿主基因可以直接影响肠道菌群的组成(例如通过影响免疫系统、肠道黏液层构成等),反过来,肠道菌群也可以通过表观遗传修饰(如DNA甲基化、组蛋白修饰,SCFAs是重要的HDAC抑制剂)等方式影响宿主的基因表达。这种基因-菌群的交互作用共同塑造了个体对疼痛的易感性和慢性化风险。
– 性别差异
慢性疼痛在女性中更为普遍,其严重程度和对治疗的反应也存在性别差异。肠道菌群的组成和功能同样存在显著的性别差异,这可能受到性激素的影响。
研究表明,性别、性激素、肠道菌群和免疫反应之间存在复杂的交互作用,共同影响疼痛的性别二态性。例如,雌激素水平的变化可以影响肠道菌群和肠道屏障功能,进而可能影响疼痛敏感性。
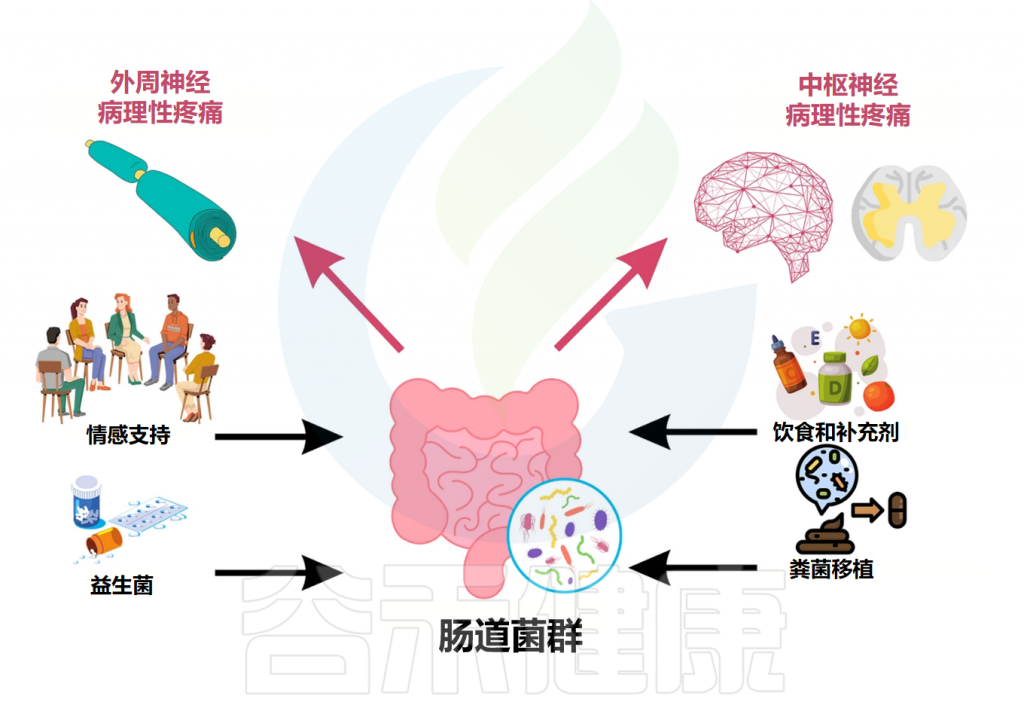
鉴于肠道菌群在慢性疼痛病理生理机制中的核心作用日益明确,针对肠道菌群的调控策略已成为开发新型疼痛干预措施的重要方向。这些策略旨在通过恢复肠道微生态平衡、调节菌群代谢、改善肠道屏障功能及抑制神经炎症等途径,达到缓解疼痛的目的。
饮食干预与益生元
饮食是塑造肠道菌群组成和功能最直接、最持久的因素之一。通过合理的膳食结构调整和特定益生元的补充,可以有效地引导肠道菌群向有益于宿主健康(包括疼痛缓解)的方向发展。
机制
代表性饮食模式
特定益生元
益生元是选择性地被宿主微生物利用并从而赋予健康益处的底物。它们通常是不可消化的碳水化合物。
抗生素和益生元/益生菌/合生元通过改变肠道微生物群来治疗疼痛有一定的希望。
适用人群与注意事项
饮食干预和益生元补充通常被认为是相对安全的。然而,个体对不同膳食成分和益生元的反应存在差异。例如,突然大量增加膳食纤维或某些益生元可能导致部分人群出现腹胀、产气等不适。对于特定疾病(如IBS),某些益生元(如高FODMAPs的菊粉)可能反而加剧症状。因此,饮食调整和益生元的使用最好在医生或营养师指导下进行,循序渐进,并关注个体耐受性。
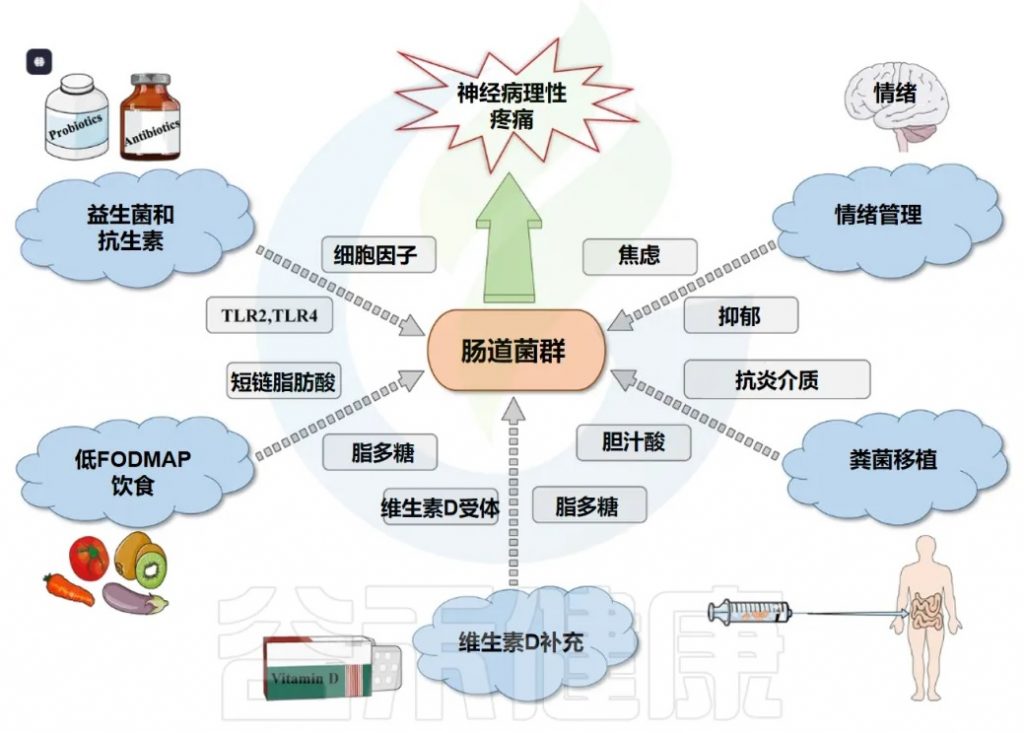
doi: 10.1186/s10194-020-01170-x
益生菌与合生元(Synbiotics)
益生菌是指当摄入足够数量时能对宿主健康产生有益作用的活性微生物。合生元则是益生菌和益生元的组合。
菌株特异性原理
益生菌的作用具有高度的菌株特异性,这意味着并非所有益生菌都具有相同的功能,其效果取决于具体的菌株。不同菌株通过不同机制发挥作用,例如:
益生菌通过调节宿主肠道植物群或肠道免疫系统的平衡来支持宿主健康,并指出广泛使用的益生菌如双歧杆菌和乳杆菌在治疗慢性疼痛疾病方面具有潜力。例如,干酪乳杆菌改善了关节炎大鼠的症状,并抑制了体内促炎因子的表达。
临床研究证据
然而,许多现有研究仅在动物中进行,其结果可能在临床阶段有所不同,且由于疼痛的不同亚型和个体差异,限制了益生菌在临床治疗慢性疼痛中的应用。更多高质量的人类数据是无价的。
合生元的优势
合生元将益生菌和为其提供选择性生长底物的益生元结合起来,理论上可以产生协同增效作用,即“1+1>2”的效果。益生元有助于益生菌在肠道内的定植、存活和发挥功能。
适用人群与选择标准
选择益生菌时,应考虑疼痛的类型、可能的菌群失调特征以及具体菌株的循证依据。由于菌株特异性的存在,不能一概而论。患者应在医生指导下选择经过临床验证、安全性较高的产品。目前,益生菌主要作为辅助干预手段,不应替代标准治疗。
粪菌移植(FMT)
FMT是指将健康个体粪便中的功能菌群,通过灌肠、口服胶囊或经内镜等途径,移植到患者肠道内,以重建健康的肠道微生态。
作用机制
FMT的核心机制在于通过引入一个完整、多样且功能健全的微生物群,来纠正受体肠道内的菌群失调,恢复肠道屏障功能,调节免疫反应,并改变菌群代谢谱,从而达到治疗疾病的目的。
在难治性慢性疼痛中的探索性应用
粪便微生物群移植已经成为慢性内脏疼痛病症(例如炎症性肠病和肠易激综合征)的有益疗法,通过恢复肠道细菌的健康平衡。
一项研究显示,FMT在剂量依赖性的情况下,对IBS相关症状的管理非常有效。目前,FMT在治疗复发性艰难梭菌感染方面已获得广泛认可,其在IBS、IBD等其他菌群失调相关疾病(包括其伴随的疼痛)中的应用也正积极探索中,并已有一些案例报道和小型临床试验显示出一定的潜力。
挑战与风险
关于FMT在疼痛治疗中的使用存在一些争议,深入阐明肠道菌群在慢性疼痛中的调节机制,增加临床数据,将有助于未来在临床实践中应用FMT。
适用人群的严格筛选
目前,FMT主要用于标准治疗无效或复发性艰难梭菌感染。对于其他疾病(包括慢性疼痛),FMT仍主要处于临床研究阶段,应在严格的伦理审查和知情同意下,由经验丰富的医疗团队在特定情况下审慎考虑。
▼
新兴与未来疗法
随着对肠道菌群及其与宿主互作机制认识的深入,更多精准靶向的菌群干预策略正在涌现。
后生元(Postbiotics)
指对宿主健康有益的无生命微生物和/或其成分,包括菌体成分(如细胞壁片段、胞外多糖)或菌群代谢产物(如SCFAs、特定酶、有机酸)。直接应用这些已明确功能的分子,可能比直接移植活菌更安全、更可控,且易于标准化。
工程益生菌(Engineered Probiotics)
通过基因工程技术改造益生菌菌株,使其能够:
噬菌体疗法(Phage Therapy)
噬菌体是特异性裂解细菌的病毒。通过筛选能够靶向清除特定有害菌(如在某些疼痛状态下过度增殖的条件致病菌)的噬菌体,可以实现对肠道菌群的精准“编辑”,而不破坏有益菌群。
针对菌群的药物开发
开发能够选择性调节肠道菌群特定功能的小分子药物。例如:
尽管靶向肠道菌群为慢性疼痛的治疗带来了希望,但仍面临诸多挑战。肠道菌群的组成和功能具有高度的个体特异性,且受饮食、生活方式、遗传、药物等多种因素影响。因此,“一刀切”的菌群干预方案可能效果有限,未来的发展方向在于个体化菌群干。
通过宏基因组学、代谢组学等多组学技术,分析个体患者的肠道菌群特征(如关键菌种的缺失/富集、特定代谢通路的异常),结合临床表型,识别与疼痛相关的菌群失调模式。
基于精准诊断结果,为患者量身定制干预方案,如选择最合适的益生菌菌株、益生元种类,甚至进行个性化的FMT供体筛选或开发定制化的后生元/工程菌。在干预过程中,持续监测患者菌群和临床症状的变化,及时调整干预策略。
肠道微生物组的调节可能很快成为慢性疼痛管理的重要工具,靶向肠道菌群为慢性疼痛的治疗开辟了充满潜力的新途径。随着研究的深入和技术的进步,有望从“经验性”干预走向“精准化”菌群调控,为饱受慢性疼痛困扰的患者带来更有效、更安全的个体化治疗方案。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Cai W, Haddad M, Haddad R, et al., The gut microbiota promotes pain in fibromyalgia. Neuron. 2025 Apr 18:S0896-6273(25)00252-1.
Minerbi A, Fitzcharles MA. Gut microbiome: pertinence in fibromyalgia. Clin Exp Rheumatol. 2020 Jan-Feb;38 Suppl 123(1):99-104. Epub 2020 Feb 12. PMID: 32116215.
Niu M, Li J, Zhuang X, Yangyang C, Chen Y, Zhang Y, Maes M. Unraveling the role of gut microbiota and plasma metabolites in fibromyalgia: Insights from Mendelian randomization and dietary interventions. Mol Pain. 2025 Jan-Dec;21:17448069251332140.
Erdrich S, Hawrelak JA, Myers SP, Harnett JE. Determining the association between fibromyalgia, the gut microbiome and its biomarkers: A systematic review. BMC Musculoskelet Disord. 2020 Mar 20;21(1):181.
Minerbi A, Fitzcharles MA. Gut microbiome: pertinence in fibromyalgia. Clin Exp Rheumatol. 2020 Jan-Feb;38 Suppl 123(1):99-104. Epub 2020 Feb 12. PMID: 32116215.
Häuser, Winfrieda,b,*; Fitzcharles, Mary-Annc,d; Henningsen, Peterb. Fibromyalgia syndrome—a bodily distress disorder/somatic symptom disorder?. PAIN Reports 10(1):p e1223, February 2025.
Liu L, Wu Q, Chen Y, Ren H, Zhang Q, Yang H, Zhang W, Ding T, Wang S, Zhang Y, Liu Y, Sun J. Gut microbiota in chronic pain: Novel insights into mechanisms and promising therapeutic strategies. Int Immunopharmacol. 2023 Feb;115:109685.