-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
炎症性肠病(IBD)主要包括克罗恩病(CD)和溃疡性结肠炎(UC)。虽然其主要病变位于胃肠道,但IBD并非单纯的局部肠道疾病。持续的免疫炎症反应还可能累及皮肤、关节、眼睛及肝胆系统等,形成多种肠外表现(extraintestinal manifestations,EIMs)。
皮肤是IBD常见的肠外受累部位之一。 研究报道,约6%–10%的IBD患者存在相关皮肤表现,部分队列报告的比例可达10%–30%。这意味着,皮肤问题并不是IBD病程中偶然出现的伴随症状,而是值得临床关注的重要表现。
皮肤疾病不仅临床表现不同,与肠道炎症活动的关系也存在明显差异。
例如,结节性红斑通常与肠道疾病活动密切相关,而坏疽性脓皮病可能在肠道炎症得到控制后仍持续存在。部分皮肤病变甚至可能在IBD确诊之前出现。另一方面,治疗IBD的生物制剂虽然能够控制炎症,却也可能诱发新的银屑病样皮损等反常性皮肤反应。
因此,IBD相关皮肤表现并不能简单理解为肠道炎症在皮肤上的延伸。不同疾病可能涉及共同的遗传易感因素和免疫炎症通路,但其具体发生机制、临床病程及治疗反应又不完全相同。
那么,肠道与皮肤之间究竟存在怎样的免疫联系?为什么同样患有IBD,不同患者却可能出现截然不同的皮肤表现?
本文总结了IBD相关皮肤疾病的临床特征、诊断及治疗策略,并从遗传易感性、免疫炎症通路、淋巴细胞迁移和肠道微生物群等方面,探讨肠道炎症与皮肤病变之间的潜在联系。
理解这些皮肤表现的临床差异及其潜在机制,有助于提高IBD相关皮损的早期识别和鉴别诊断能力,并为兼顾肠道与皮肤炎症的治疗决策提供参考。
根据皮肤病变与IBD之间的关系,相关表现大致可以分为三类。
一类是疾病特异性皮肤表现,其病理特征与肠道疾病本身具有直接联系,代表性疾病为转移性克罗恩病。
第二类是反应性皮肤表现,主要涉及异常免疫炎症反应,包括结节性红斑、坏疽性脓皮病及Sweet综合征。
第三类是与IBD存在共同免疫机制的皮肤疾病,例如银屑病和化脓性汗腺炎。两者可能共享部分遗传易感因素和炎症通路,但并不意味着所有相关皮损均由IBD直接引起。
此外,部分皮肤表现与IBD治疗有关,例如抗TNF-α药物诱发的银屑病样皮疹。
这些疾病虽然都可能发生于IBD患者,但其临床特征、组织病理、与肠道活动度的关系,以及治疗策略存在明显差异。下面我们来介绍每一种相关皮肤病的表现。
结节性红斑:最常见的IBD相关皮肤表现之一
结节性红斑(erythema nodosum,EN)是IBD最具代表性的皮肤表现之一,约见于3%–10%的UC患者及4%–15%的克罗恩病患者。
小腿突然出现疼痛性红结节
结节性红斑通常急性起病,典型表现为双下肢,尤其是小腿胫前区域出现多个红色、隆起、疼痛明显的皮下结节。病变局部常有压痛及温度升高,部分患者还可伴有关节痛、发热等全身症状。
从病理学角度来看,结节性红斑属于脂膜炎的一种,主要累及皮下脂肪组织间隔,因此被归类为间隔性脂膜炎。早期病变可见中性粒细胞浸润,但通常不伴有血管炎。
与一些严重的溃疡性皮肤疾病不同,结节性红斑一般不会发生皮肤破溃,皮损消退后通常也不会留下永久性瘢痕。
结节性红斑活动往往与IBD肠道炎症活动平行
当IBD处于活动期时,结节性红斑可能出现或加重;随着肠道炎症得到控制,皮肤结节也常逐渐改善。因此,结节性红斑的出现有时可以为临床评估IBD活动状态提供线索。
并非IBD特有:还需要排除哪些疾病?
链球菌感染、结核、结节病、药物反应及其他自身免疫性疾病,同样可能导致类似皮损。
因此,对于疑似结节性红斑的患者,除观察皮损的形态、分布和压痛特点外,还需要结合病史及相关检查进行病因判断。常用的初步检查包括血常规、C反应蛋白等;如果怀疑存在结核或链球菌感染,则需要进一步进行针对性筛查。对于表现不典型的患者,可考虑皮肤活检。
如何治疗?控制肠道炎症是重要环节
对症处理可包括休息、抬高患肢及局部加压等措施。部分患者可能需要抗炎药物或其他系统治疗。
需要注意的是,非甾体抗炎药虽然能够缓解结节性红斑引起的疼痛,但可能加重IBD,因此使用时应谨慎评估。
对于与IBD活动密切相关的结节性红斑,随着基础疾病得到控制,皮损往往也能够逐渐改善。
坏疽性脓皮病:发生率较低,可能造成严重组织损伤
坏疽性脓皮病(pyoderma gangrenosum,PG)是另一种重要的IBD相关反应性皮肤表现,约发生于1%–2%的IBD患者。其特征为大型、疼痛的溃疡迅速形成,这些溃疡通常出现在腿部。一些研究表明,该疾病在女性中的发病率较高。
虽然坏疽性脓皮病的发生率低于结节性红斑,但其病变通常更加严重,可造成明显疼痛、皮肤缺损和瘢痕,对患者生活质量产生较大影响。
典型的临床表现:快速进展的疼痛性皮肤溃疡
病变早期可能表现为丘疹、脓疱或小范围皮肤破损,随后迅速扩大,形成边缘不规则、紫红色、潜行性的溃疡,周围常伴有红斑和硬结。
病变主要发生于下肢伸侧,但并不局限于腿部,也可累及腹壁,尤其是在腹部手术后愈合处的皮肤表面。
编辑
根据临床形态,坏疽性脓皮病还可分为不同类型。
一种是脓疱型,表现为疼痛的脓疱和环形溃疡;
一种是水疱型,会迅速形成水疱,最终导致溃疡和坏死;
一种是增生型,表现为边界清晰、较浅的溃疡,最终发展成外生性病变。
典型的或溃疡性坏疽性脓皮病表现为迅速形成的疼痛溃疡,边缘呈暗紫色,周围有硬结和红斑。
一个重要特点是创伤性反应
所谓创伤性反应(pathergy),是指皮肤受到轻微损伤后,出现异常强烈的炎症反应,并在损伤部位形成新的皮损。文献报道,约30%的坏疽性脓皮病病例可出现这一现象,即针刺、昆虫叮咬或手术切口等轻微损伤,也可能诱发新的溃疡,或使已有皮损进一步扩大。
注:超过一半的创伤性反应患者存在某种基础疾病,通常是炎症性肠病或关节炎。
这一特点对临床处理十分重要。对于疑似坏疽性脓皮病的患者,需要注意避免不必要的皮肤创伤,并在专业评估下开展伤口处理。
坏疽性脓皮病诊断是通过排除法来确定的
既基于临床表现,也基于组织学检查。除了一些非特异性的组织学特征外,没有其他特定的实验室指标可用于其诊断。
主要诊断标准包括:在排除其他导致皮肤溃疡的原因后,出现快速发展的、伴有疼痛的、坏死性皮肤溃疡,其边缘不规则、呈紫色且凹凸不平。
临床医生通常需要结合皮损形态、疾病进展速度、病史及病理结果,同时排除感染、血管性疾病和其他原因导致的皮肤溃疡。
目前,Delphi诊断标准、Su标准及PARACELSUS评分系统可用于辅助临床判断。
注:Delphi专家共识提出了诊断溃疡型坏疽性脓皮病的1项主要标准和8项次要标准,有助于临床医生减少误诊,并筛选适合纳入临床试验的患者。
在PARACELSUS评分系统中,皮肤活检仅被列为次要诊断标准。考虑到坏疽性脓皮病患者接受皮肤活检的比例存在差异,这一设置强调,相较于单纯依赖组织病理学结果,结合临床表现及病史进行综合判断,往往更有助于PG的诊断。
肠道炎症缓解,坏疽性脓皮病仍可能持续存在?
坏疽性脓皮病的治疗同样比结节性红斑复杂。除温和的局部伤口护理、感染监测和疼痛管理外,部分患者还需要接受全身性免疫抑制治疗。
糖皮质激素和环孢素是重要的系统治疗选择,对于部分难治性病例,也可能考虑抗TNF-α等生物制剂。
需要特别注意的是,坏疽性脓皮病的疾病活动不一定与肠道炎症同步。
部分患者即使IBD已经得到控制,坏疽性脓皮病仍可能持续存在或反复发作。因此,不能简单认为只要肠道症状缓解,坏疽性脓皮病就一定会随之好转。
这也是结节性红斑和坏疽性脓皮病在临床管理上的一个重要区别:
前者通常与肠道炎症活动密切相关;
后者可能具有相对独立的炎症过程,需要针对皮肤病变本身进行持续评估和治疗。
Sweet综合征:伴随全身炎症的急性皮肤表现
Sweet综合征(Sweet’s syndrome,SS),又称急性发热性中性粒细胞性皮病,是IBD相对少见的一种反应性皮肤表现。
突发疼痛性红斑,还可能伴随发热
其典型表现为突然出现的疼痛性红斑、斑块或结节,常分布于上肢、躯干、头颈部,并可能伴有发热、白细胞增多及炎症指标升高。
编辑
与结节性红斑主要累及皮下脂肪组织不同,Sweet综合征的组织病理学特点通常是真皮内出现明显的中性粒细胞浸润,而无血管炎证据。
如何确诊?临床表现与组织病理是关键
经典型Sweet综合征的诊断需要结合临床表现与组织病理结果。突发疼痛性红斑或结节,以及真皮内中性粒细胞浸润是主要诊断依据;发热、白细胞升高、伴随炎症性疾病及糖皮质激素治疗反应等,可提供进一步支持。
Sweet综合征由什么诱发?
IBD相关Sweet综合征既可能与肠道疾病的免疫异常有关,也可能由药物诱发。
例如,硫唑嘌呤(azathioprine,AZA)虽然是IBD治疗中使用的免疫调节药物,但也被报道与药物诱发的Sweet综合征有关。
部分TNF-α抑制剂同样存在既可能治疗、也可能诱发Sweet综合征的报道,提示相关免疫通路具有一定复杂性。
治疗如何选择?识别诱因与控制炎症
对于药物诱发的病例,识别可能的致病药物十分重要。治疗通常需要考虑糖皮质激素,其他选择包括秋水仙碱、碘化钾及部分免疫调节药物。对于难治性或激素依赖性病例,IL-1或TNF-α相关靶向治疗也受到关注。
转移性克罗恩病:发 在肠道之外的肉芽肿性炎症
转移性克罗恩病(metastatic Crohn’s disease,MCD)是一种罕见的克罗恩病特异性皮肤表现。
这里的“转移性”并非肿瘤转移,而是指在与胃肠道病变不连续的皮肤部位,出现与肠道克罗恩病具有相似组织病理特征的肉芽肿性炎症。
其组织学特点为非干酪样肉芽肿形成。
皮损形态多样,会阴部“刀割样裂隙”
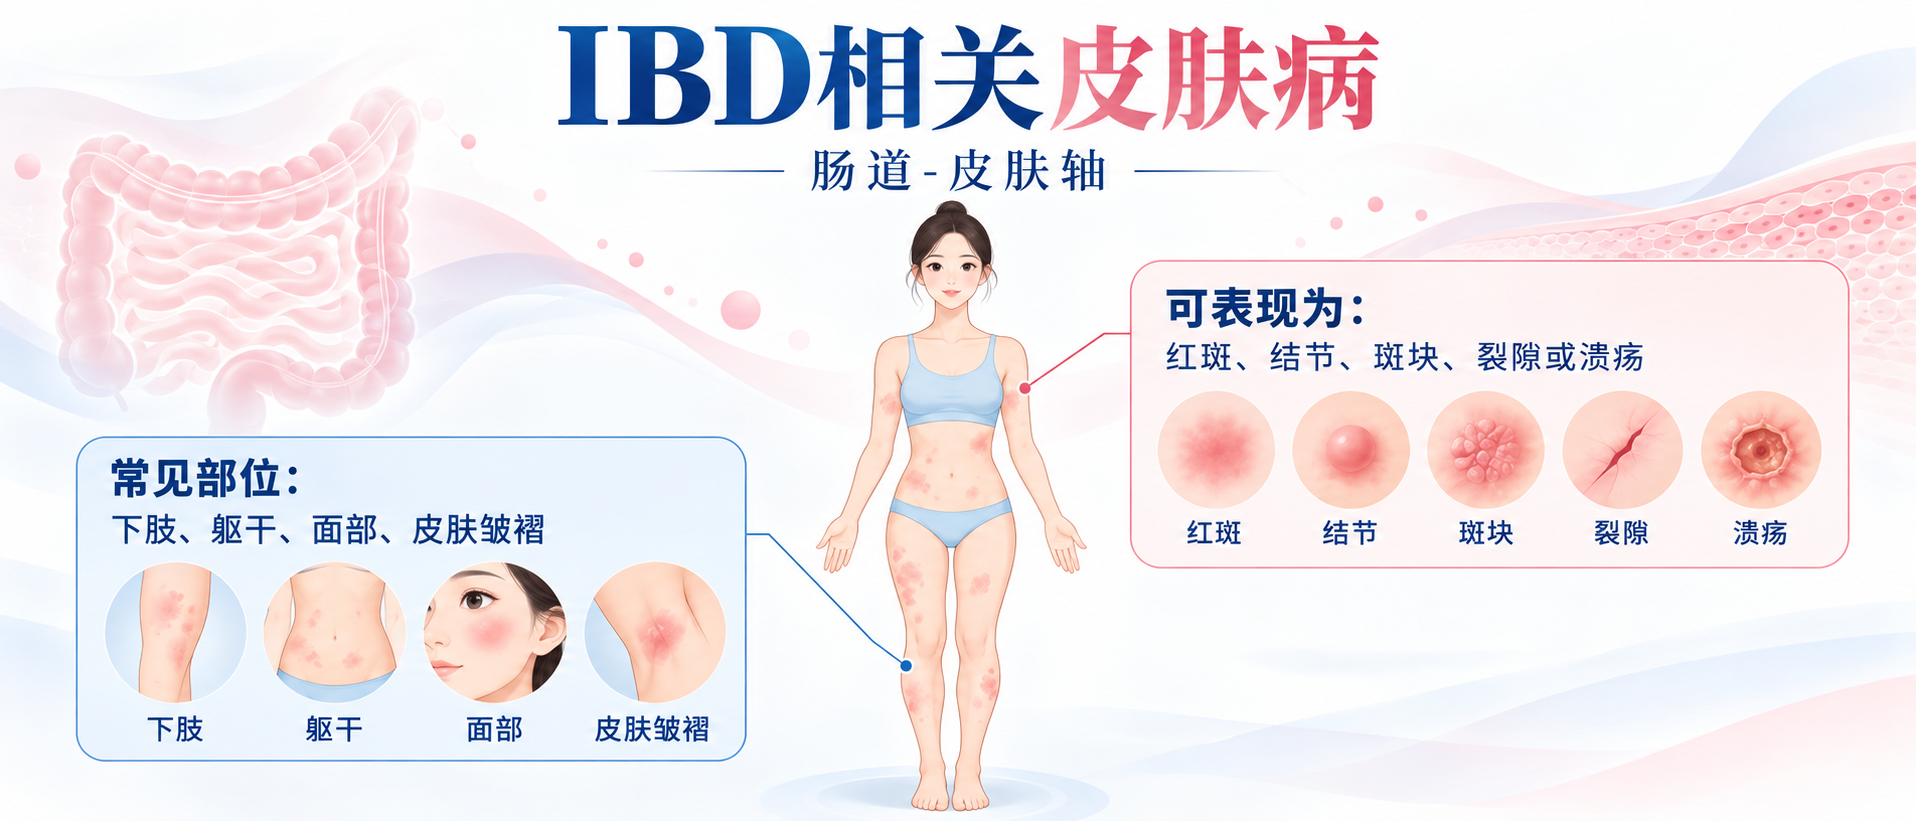
MCD的临床表现具有较大差异,可以表现为红斑、结节、斑块、深部裂隙或溃疡,病变可累及下肢、躯干、面部及皮肤皱褶区域。
编辑
其中,外生殖器及会阴部受累是较具特征性的表现之一,尤其在成年患者中值得关注。病变可能表现为外阴、阴囊或会阴部水肿、深部溃疡、肥厚性改变以及具有特征性的刀割样裂隙。
容易漏诊?关键在了解病史与皮肤活检
由于这些皮损形态多样,且部分表现与感染性或其他炎症性皮肤疾病相似,MCD常面临诊断延迟的问题。
在组织病理学上,MCD也需要与结节病、皮肤结核及异物肉芽肿反应等疾病进行鉴别。
因此,诊断通常需要结合已知的克罗恩病病史、皮损分布及皮肤活检结果,必要时进一步排除其他肉芽肿性疾病。
应先评估药物治疗,再考虑手术
治疗方面,MCD可能需要局部或全身性糖皮质激素、免疫抑制剂、抗生素及生物制剂等综合治疗。
甲硝唑是文献中较常使用的抗生素之一,英夫利西单抗等抗TNF-α药物也被用于部分病例的诱导及维持治疗。
在免疫抑制剂方面,伊氟利松被一致认为是对 MCD 的胃肠道症状进行诱导治疗和维持治疗的有效药物。治疗选项包括类固醇(局部使用或全身使用)、甲硝唑、磺胺氯吡嗪、甲氨蝶呤、高压氧治疗、AZA以及抗TNF-α抗体等。
对于严重会阴部MCD,研究强调应在考虑手术干预前评估抗TNF-α治疗的可能性。对于药物治疗无效的严重病变,才可能进一步考虑手术治疗。
注:对于那些对药物治疗无反应的严重皮肤溃疡,可以考虑采用手术切除并结合口服硫酸锌的治疗方法。
牛皮癣:共 共享炎症通路,但治疗反应并不完全相同
银屑病(牛皮癣)是一种慢性免疫介导性炎症性皮肤病,主要表现为边界清楚的红色斑块,表面覆盖银白色鳞屑,可伴有不同程度的瘙痒。
斑块型银屑病是最常见的临床类型,通常累及头皮、肘部、膝部及臀间沟等部位。
编辑
编辑
除斑块型外,银屑病还包括点滴型、脓疱型和红皮病型等不同类型。部分患者可能出现掌跖受累,表现为角化过度、厚鳞屑或脓疱性病变。
临床上,银屑病通常依靠典型皮损特征进行诊断,必要时结合组织病理学检查。银屑病面积与严重程度指数(PASI)则常用于疾病严重程度和治疗效果评估。
银屑病与IBD,共享一条炎症通路
从遗传学和免疫学角度看,两种疾病均涉及免疫调节异常,并存在部分共同的遗传易感位点及炎症通路,尤其与IL-23/Th17轴有关。
IL-23参与维持Th17细胞相关反应,而Th17细胞产生的IL-17等细胞因子可促进局部炎症及免疫细胞募集。
抗炎药物也可能诱发银屑病?
不过,两种疾病共享部分炎症通路,并不意味着针对同一靶点的药物对肠道和皮肤具有完全相同的作用。
例如,抗TNF-α药物能够治疗部分IBD及银屑病患者,但在某些接受抗TNF治疗的IBD患者中,反而可能出现新发或加重的银屑病样皮损。
这种反常性皮肤反应,是IBD治疗中值得关注的问题,后文将进一步讨论。
化脓性汗腺炎:反复出现的深部结节、脓肿和窦道
化脓性汗腺炎(hidradenitis suppurativa,HS)是一种慢性、复发性炎症性皮肤疾病。
化脓性汗腺炎的典型表现是皮肤皱褶区域反复出现疼痛性深部炎性结节和脓肿,常见部位包括腋窝、腹股沟、会阴、肛周、臀部及乳房下方。
编辑
随着疾病反复发作,部分患者可能形成慢性窦道、瘢痕及局部组织结构改变。
与短期发生、可逐渐消退的普通炎症性皮损不同,化脓性汗腺炎往往具有长期反复发作的特点,慢性疼痛、渗出、瘢痕和活动受限可能显著影响患者生活质量。
临床诊断主要依靠典型皮损、解剖部位及反复发作的病程,目前缺乏单一的特异性实验室诊断指标。
化脓性汗腺炎与IBD存在关联
化脓性汗腺炎与IBD之间存在一定的流行病学关联,部分研究尤其关注化脓性汗腺炎与克罗恩病共存的情况。
在潜在机制上,两种疾病可能涉及共同的遗传易感因素、细胞因子调节异常、先天免疫反应及微生物群变化。
两种疾病同时存在,治疗该如何兼顾?
在治疗方面,化脓性汗腺炎可根据病情严重程度采用局部克林霉素、系统性抗菌药物及其他抗炎治疗。对于部分中重度患者,可考虑阿达木单抗等生物制剂。
当化脓性汗腺炎与IBD同时存在时,治疗方案还需要综合考虑两种疾病的活动情况以及不同药物的适应证与风险。
编辑
Al-Rubaye K,et al., Transl Gastroenterol Hepatol. 2026 Sep 19
上述多种皮肤疾病在临床表现上差异明显,但在发病机制方面却存在一些共同特征。
近年来,研究者提出了肠道–皮肤轴的概念,用于解释肠道与皮肤之间可能通过免疫系统、微生物群及其代谢产物形成的相互联系。
这一机制强调遗传易感性、肠道屏障损伤以及异常免疫反应,可能共同影响肠道和皮肤两个组织系统。
IBD与皮肤表现共同发生的潜在影响因素总览图
编辑
doi: 10.21037/tgh-2025-142
遗传易感性与肠道屏障损伤
遗传因素在IBD发生发展中发挥重要作用。
NOD2与ATG16L1:两个值得关注的IBD易感基因
NOD2是克罗恩病的重要易感基因,其编码蛋白参与细菌组分识别及先天免疫调节。
ATG16L1则与自噬过程及细胞稳态维持有关。
研究提示,NOD2和ATG16L1相关异常可能损害潘氏细胞功能,影响肠道屏障完整性,使肠道微生物成分更容易与宿主免疫系统接触。
肠道屏障受损,如何进一步激活炎症反应?
正常情况下,肠道黏液层、上皮紧密连接以及黏膜免疫系统共同维持肠道屏障功能。
在IBD中,这些屏障结构和功能可能发生改变,导致肠道通透性增加,从而促进微生物相关成分与免疫系统之间的相互作用,并进一步激活炎症反应。
肠道与皮肤的共同炎症易感性
IBD与部分免疫介导性皮肤疾病共享遗传风险位点,包括与IL-23相关的免疫调节基因。共同遗传背景可能使部分患者更容易同时发生肠道和皮肤炎症,但遗传因素本身并不足以解释所有皮肤表现。
Th1/Th17及炎症细胞因子:共同的免疫通路
在IBD中,肠道抗原提呈细胞受到微生物及炎症信号刺激后,可分泌TNF-α、IL-1、IL-6、IL-12和IL-23等细胞因子。
炎症信号如何持续放大?
这些炎症信号参与初始CD4⁺ T细胞活化及分化,促进Th1和Th17等效应T细胞反应。
Th1相关炎症反应涉及IFN-γ等细胞因子,而Th17细胞可产生IL-17、IL-22等炎症介质。IL-23则参与维持和增强Th17相关免疫反应。
当这些炎症通路持续激活时,可促进免疫细胞募集、局部组织损伤及炎症放大。
编辑
Al-Rubaye K,et al., Transl Gastroenterol Hepatol. 2026 Sep 19
促炎反应与免疫调节失衡
与此同时,调节性T细胞(Treg)及IL-10等免疫调节机制参与抑制过度炎症。
在坏疽性脓皮病等皮肤疾病中,研究观察到Th17相关炎症信号增强及Treg细胞数量下降,提示促炎反应和免疫调节之间的平衡可能受到破坏。因此,肠道与皮肤可能并不是发生了完全独立的两种炎症,而是在不同组织中表现出部分共同的免疫调控异常。
不过,不同组织对炎症细胞因子的依赖程度并不完全相同,这也是某些免疫靶向药物对肠道和皮肤具有不同治疗效果的原因之一。
免疫细胞迁移与中性粒细胞活化
除了共同的炎症通路,免疫细胞在不同组织间的迁移也是连接肠道与皮肤的重要潜在机制。
T细胞如何找到炎症部位?
正常情况下,T细胞的组织归巢受到黏附分子和趋化因子的调控。例如,MAdCAM-1/α4β7和CCL25/CCR9等分子参与淋巴细胞向肠道迁移。
在炎症状态下,趋化因子的表达可能发生改变,从而影响免疫细胞在不同组织间的分布。
CCL20/CCR6等趋化信号:连接肠道与皮肤的潜在线索
研究发现,肠上皮细胞和皮肤角质形成细胞均能够产生CCL20,而CCL20可募集表达CCR6的Th17细胞。
CCL27/CCL28与CCR10,以及CXCL9、CXCL10、CXCL11与CXCR3等趋化因子–受体系统,也可能参与肠道和皮肤炎症组织中的淋巴细胞募集。
这些发现为肠道炎症相关免疫细胞可能影响皮肤提供了机制解释。
中性粒细胞异常活化:NETs如何进一步放大炎症?
除淋巴细胞外,中性粒细胞的异常活化也具有重要作用。
IBD患者的部分循环中性粒细胞可能处于预激活状态,释放TNF-α、IL-1β等炎症介质,并通过中性粒细胞胞外诱捕网(NETs)及相关信号促进炎症放大。
编辑
中性粒细胞还可能影响巨噬细胞功能,促进其向促炎性M1表型极化,使局部炎症持续存在。
这种免疫异常在坏疽性脓皮病和Sweet综合征等中性粒细胞性皮病中尤其值得关注。
肠道菌群与微生物代谢产物
肠道菌群失调被认为是连接IBD与皮肤炎症的潜在因素之一。IBD患者的菌群异常不仅涉及保护性共生菌减少和条件致病菌增殖,还与肠道黏液层受损、上皮紧密连接异常及肠道通透性增加有关。这些变化可能使更多微生物相关成分接触免疫系统,进一步参与全身炎症反应。
部分研究发现,与健康人群相比,IBD患者粪便中的产短链脂肪酸细菌减少。研究人员指出,肠道微生物产生的短链脂肪酸能够支持具有抗炎作用的调节性T细胞(Treg)生成。
银屑病患者的皮损区域可出现菌群丰富度及多样性下降,Shannon多样性指数低于非皮损区域和对照样本。研究提到,白色念珠菌(Candida albicans)、马拉色菌(Malassezia)和金黄色葡萄球菌的异常增多可能与银屑病症状加重有关。
注:肠道菌群参与IBD皮肤表现的具体因果机制,仍有待进一步研究。
肠道微生物失调和饮食可能会
在银屑病中诱导轻度和慢性炎症
编辑
Liu S, et al., Cell Communication and Signaling, 2024
肠道通透性增加导致的“肠漏”可以诱导脂多糖(LPS)、脂蛋白(LTA)、外毒素(ET)和肽聚糖(PG)等强效炎症介质的释放,以及肠道细菌DNA进入血液。
柠檬酸杆菌感染可以刺激ILC3s产生IL-22和IL-17A,从而有助于黏膜免疫。ILC3s的功能也受到微生物代谢产物短链脂肪酸(醋酸、丁酸和丙酸)的影响。
乙酸和丙酸与结肠ILC3s上的FFAR2受体相互作用,激活AKT或ERK信号通路,并通过STAT3轴释放IL-22;
而丁酸则降低ILC3s的数量,同时,丁酸增强Treg细胞的分化,叶酸有助于维持Treg细胞,中长链脂肪酸支持Th1和Th17细胞的分化。
高盐饮食导致渗透压改变激活P38/MAPK通路,进而上调下游靶点NFAT5和SGK1,这反过来驱动转录因子RORγt、IL-23R、IL-17A和IL-17F的表达,导致Th17分化。上调的SGK1通过磷酸化Foxo1促进IL-23R的表达和稳定Th17分化。
IBD的治疗不仅涉及肠道炎症控制,也需要考虑相关皮肤疾病及治疗药物的不良反应。
随着生物制剂在IBD治疗中的广泛应用,一种值得关注的现象逐渐被认识:某些原本用于抑制炎症的药物,反而可能诱发新的炎症性皮肤表现。
抗TNF-α治疗与反常性银屑病
抗TNF-α药物:同时作用于肠道与皮肤炎症
TNF-α是参与IBD和部分皮肤炎症性疾病的重要促炎细胞因子。
英夫利西单抗、阿达木单抗等抗TNF-α药物能够用于IBD治疗,同时也可改善部分银屑病及其他免疫介导性皮肤病。
然而,一些患者在接受抗TNF-α治疗后,可能出现新发银屑病或原有银屑病加重,这种现象被称为反常性银屑病(paradoxical psoriasis)。
研究报道,相关皮损约发生于2%–5%的治疗患者,在IBD患者中可能更加常见。
TNF-α与IFN-α:反常性炎症背后的免疫调节机制
其潜在机制可能与TNF-α抑制后,浆细胞样树突状细胞(pDCs)产生IFN-α的调控发生改变有关,从而诱发银屑病样炎症反应。
这一现象说明,阻断某一炎症通路并不一定能够同时抑制所有组织中的炎症。部分情况下,免疫网络中的调节平衡发生改变,反而可能促进其他类型的炎症。
IL-17抑制剂与IBD发生或加重风险
另一个值得关注的问题是IL-17抑制剂。
IL-17抑制剂在银屑病、银屑病关节炎和强直性脊柱炎治疗中具有明确疗效,但也有新发或加重IBD的相关报道。
这一现象进一步说明,尽管肠道与皮肤共享部分炎症通路,但不同组织对同一种免疫靶向干预的反应可能存在差异。
因此,对于同时患有IBD与皮肤疾病的患者,选择生物制剂时不能仅依据其对单一疾病的治疗作用,而应综合评估肠道和皮肤两方面的获益与风险。
如何区分药物不良反应与IBD相关皮肤表现?
IBD患者在治疗过程中出现新发皮损,并不一定意味着肠道炎症加重。
可能的原因包括:IBD相关肠外表现、独立存在的皮肤疾病、药物诱发的反常性炎症,以及感染性皮肤病变。
尤其对于使用抗TNF-α药物或其他免疫抑制剂的患者,细菌、真菌、病毒及机会性感染风险也需要受到关注。
由于这些皮损在临床形态上可能存在重叠,诊断需要结合药物使用时间、皮损特征、肠道疾病活动状态及必要的检查。
明确病因后,才能决定是继续观察、增加针对皮肤病变的治疗,还是重新评估当前IBD用药方案。
肠道与皮肤需要共同管理
2024年欧洲克罗恩病和结肠炎组织(ECCO)发布的IBD肠外表现指南明确指出,结节性红斑通常与活动性肠道炎症密切相关。当皮损与IBD活动有关时,治疗的首要目标是控制基础肠道疾病,随着肠道炎症缓解,皮损通常也会逐渐消退。
坏疽性脓皮病的活动可能与肠道炎症不同步,即使肠道症状已经缓解,皮肤溃疡仍可能持续进展。ECCO指南因此建议,对于严重坏疽性脓皮病,应尽早考虑具有系统性抗炎作用的治疗,尤其是英夫利西单抗等抗TNF-α药物,同时配合适当的伤口护理和疼痛管理。
Sweet综合征需要关注是否存在药物诱发因素;化脓性汗腺炎则需要长期管理复发性炎症、窦道和瘢痕。对于接受抗TNF-α治疗后出现银屑病样皮损的患者,还需要判断其是否属于反常性皮肤反应。
因此,IBD相关皮肤病的管理应建立在尽量准确识别皮损类型的基础上,同时评估肠道疾病活动和皮肤病变的严重程度。
在临床实践中,可结合症状、C反应蛋白(CRP)、粪便钙卫蛋白以及必要的内镜检查、肠道菌群检测评估肠道炎症。
编辑
<来源:谷禾健康肠道菌群检测数据库>
皮肤方面则根据疾病类型观察皮损面积、溃疡愈合情况、结节或脓肿数量及复发频率。
注:对于病情复杂的患者,胃肠病科、皮肤科及临床营养团队的共同评估尤其重要。
从肠道入手:饮食和营养干预
除了常规抗炎和免疫调节治疗,肠道微生物群及其代谢功能也为IBD相关皮肤病的干预提供了新的研究方向。
前文提到,肠道菌群失衡可能通过影响屏障功能、微生物代谢产物及免疫细胞反应,参与系统性炎症的形成。从这一角度看,改善肠道微环境,有可能通过降低炎症负荷,间接影响皮肤炎症。
地中海饮食:可作为长期健康饮食的基础
2024年美国胃肠病学会(AGA)临床实践建议指出,在没有禁忌证的情况下,IBD患者可以采用以蔬菜、水果、全谷物、橄榄油、鱼类等为基础的地中海式饮食,并适当减少超加工食品、添加糖和过多盐分的摄入。
注:对于存在症状性肠道狭窄、营养不良或特殊食物耐受问题的患者,膳食纤维的种类、质地及摄入量需要个体化调整,不宜机械地增加高纤维食物。
对于IBD合并皮肤病的患者,合理的做法仍是根据肠道疾病类型、活动程度和肠道菌群检测报告中的营养状态选择有证据支持的饮食或营养治疗,并将皮损变化作为值得关注的临床观察指标。
如果说饮食和营养干预主要是通过改善肠道环境及基础疾病状态发挥作用,那么益生菌、营养补剂等策略,则试图更直接地影响肠道微生物群及其功能。
益生菌:银屑病研究已有积极信号
一项随机、双盲、安慰剂对照试验,纳入90名斑块型银屑病患者,研究由三种特定菌株组成的益生菌组合,包括:
Bifidobacterium longum CECT 7347;
Bifidobacterium lactis CECT 8145;
Lactobacillus rhamnosus CECT 8361。
经过12周干预,益生菌组达到银屑病面积与严重程度指数改善75%(PASI 75)的患者比例为66.7%,安慰剂组为41.9%。研究还观察到益生菌干预与肠道菌群组成改变及较低的后续复发风险有关。
回顾性分析显示,83.7% 的银屑病患者在接受唾液链球菌K-12治疗 24 周后,PASI 评分改善了 100%,并且随着治疗持续时间的延长,疗效持续改善。
一项随机对照试验发现,持续口服婴儿双歧杆菌35624(B.fantis)可显著改善银屑病的进展,并降低C反应蛋白和肿瘤坏死因子TNF-α的表达,显示出免疫调节作用。人体微生物群的作用不仅限于粘膜免疫系统,还延伸到全身免疫系统。
营养补充剂与植物活性成分:肠–皮轴干预的新方向
除饮食调整和益生菌外,Omega-3脂肪酸、维生素D及部分植物活性成分也受到关注,其潜在作用涉及炎症调节、肠道屏障功能和肠道微生物群。
Omega-3脂肪酸与维生素D: 鱼油具有一定抗炎潜力,但银屑病临床试验结果并不一致。大型VITAL试验发现,补充维生素D(2000 IU/天)可使总体自身免疫性疾病发病风险降低约22%。
姜黄素: 是目前较值得关注的植物活性成分。研究提示,姜黄素可能改变肠道菌群组成及微生物代谢功能。部分银屑病临床试验观察到PASI评分改善和炎症指标下降;UC临床研究也发现,其作为常规治疗的辅助干预具有一定潜力。
白藜芦醇: 动物研究发现,白藜芦醇能够改善肠道屏障功能,并改变拟杆菌属、Alistipes、Parabacteroides等菌群的相对丰度;另有研究观察到Blautia、Dorea等菌群增加。
槲皮素: 在咪喹莫特诱导的银屑病样皮炎小鼠模型中,槲皮素可减轻皮损,并降低TNF-α、IL-6及IL-17等炎症信号,提示其可能通过调节IL-23/Th17通路发挥作用,但仍缺乏充分的人体临床证据。
锌:对于化脓性汗腺炎,一项22人的初步研究发现,口服锌后8人完全缓解、14人部分缓解。2025年欧洲HS指南也提出,可考虑将葡萄糖酸锌用于轻中度化脓性汗腺炎的二线维持治疗,但长期高剂量补锌存在铜缺乏等风险。
肌醇+叶酸+镁:一项纳入20名伴糖代谢异常的化脓性汗腺炎患者的小规模研究发现,在常规抗生素治疗基础上补充肌醇、叶酸和脂质体镁,6个月后皮损严重程度评分(Sartorius评分)由38.3降至27.3,同时胰岛素抵抗指标也有所改善。
海藻硫酸化多糖SXRG84:一项双盲、安慰剂对照交叉试验,44名患有炎症性皮肤疾病的受试者每日口服2 g SXRG84、持续6周后,研究观察到IFN-γ、IL-1β、TNF-α等炎症指标的变化,约23%的参与者报告皮肤状况有所改善。
此外,乳清蛋白提取物XP-828L,以及辅酶Q10、维生素E和硒的联合补充,也在银屑病人体研究中显示出一定辅助治疗潜力。
IBD相关皮肤病变不仅是肠道炎症的肠外表现,也反映了肠道屏障、免疫系统与皮肤之间复杂的相互作用。不同皮肤疾病的发生机制和临床病程存在差异,因此需要兼顾肠道炎症控制与皮肤病变的针对性治疗。
随着肠–皮轴研究的深入,从肠道微生态入手干预皮肤炎症正成为值得关注的新方向。未来,结合肠道菌群检测、免疫指标及临床表现开展更精准的研究,或将为IBD相关皮肤疾病的个体化管理提供新的思路。
注:本文仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
主要参考文献:
Al-Rubaye K, Alrubaiy L. The overlooked surface: cutaneous manifestations of inflammatory bowel disease. Transl Gastroenterol Hepatol. 2026 Sep 19;11:113.
Miulescu RG, Costescu M, Marin RC, Mușetescu A, Muntean C, Roşca I, Adam II, Ilici A, Coman OA. The Gut-Skin Axis in Pediatric Atopic Dermatitis: Nutritional Modulation, Microbiome Interactions, and Emerging Precision Approaches. Nutrients. 2026 Sep 23;18(19):3138.
Zhao N, Cao W, Liu W, Wu L, Huang R. Gut Microbiota in Psoriasis: Evidence for Dysbiosis, Pathological Mechanisms, Causality, and Therapeutic Implications. Clin Cosmet Investig Dermatol. 2026 Oct 1;19:630661.
Demirbağ Gül B, Şentürk N. Elevated fecal calprotectin levels in psoriasis: association with disease severity. Cutan Ocul Toxicol. 2026 Sep 28:1-8.
He R, Zhao S, Cui M, Chen Y, Ma J, Li J, Wang X. Cutaneous manifestations of inflammatory bowel disease: basic characteristics, therapy, and potential pathophysiological associations. Front Immunol. 2023 Oct 26;14:1234535.
谷禾健康
清晨被肠绞痛惊醒,聚餐后腹胀如鼓,皮肤莫名冒出红疹…这些现代人熟悉的困扰,根源可能都指向同一个问题——肠道炎症。外卖高油盐饮食、熬夜加班压力、抗生素滥用,正让我们的肠道炎症悄悄出现。
肠道炎症不仅是消化系统问题,更是影响全身健康。肠道是人体最大的免疫器官(70%免疫细胞位于肠道),肠道炎症的严重性远不止于表面症状,当它持续存在时可能导致炎症性肠病、糖尿病、关节炎、抑郁焦虑等神经系统疾病、免疫相关疾病(如过敏)等非常多慢性疾病。研究表明,慢性肠道炎症患者的结直肠癌风险提高,自身免疫疾病患者的肠道通透性标志物连蛋白(Zonulin)水平显著高于健康人群。
正因为它如此重要,肠道炎症已经成为现代医学关注的重要问题。现代医学通过多维度指标评估肠道炎症水平,例如,直接生化标志物,肠道屏障功能等。在谷禾肠道菌群检测报告中,也有“肠道炎症”这项指标。
<来源:谷禾肠道菌群检测数据库>
本文深入解析肠道炎症的成因链条——从麸质敏感、工业种子油到慢性压力的触发机制;揭示其如何通过”肠-脑轴“、”肠-皮肤轴“等方式引发全身性疾病;并提供相关干预方案,涵盖屏障修复、菌群重建及创新生物制剂应用等。
▸ 炎症:是什么?如何作用?
炎症是机体对有害刺激(如病原体、有毒化合物或受损细胞)的反应。它通过清除有害因子并启动修复过程发挥保护作用。
▸ 炎症的四个阶段
炎症过程包含四个不同阶段:
1.静息期,受损细胞释放介质启动炎症反应;
2.血管期,出现血管扩张和血浆外渗;
3.细胞期,中性粒细胞、单核细胞和巨噬细胞浸润,随后激活适应性免疫;
4.消退期,修复组织并清除碎片和炎症细胞。
因此,炎症本质上是一个具有明确起始、发展和结束阶段的生理过程。
慢性肠道炎症的各个阶段
Deraison C,et al.Annu Rev Pharmacol Toxicol.2025
急性炎症可能会发展成慢性炎症
然而,部分患者短期的炎症可能会发展为慢性炎症性疾病,炎症症状持续数月至数年。慢性炎症通常由于未能消除急性炎症的致病因子所致。这可能发生在病原体(如细菌、真菌、寄生虫)感染中,这些病原体能够抵抗宿主防御机制,或当刺激物持续存在且无法被内源性机制(如酶、炎症细胞吞噬作用)降解时。
自身免疫性疾病中也会出现慢性炎症,此时免疫系统错误地将自身蛋白质识别为外来抗原并引起组织破坏,如乳糜泻。正常情况下标志炎症过程结束的消退机制失调同样可导致慢性炎症。在肠道等黏膜表面,负责”处理”外来抗原和调节黏膜组织对微生物暴露反应的机制发生故障也可引起慢性炎症性疾病。这些故障机制包括屏障功能的各个层面——物理屏障(黏液)、细胞屏障(上皮细胞)和免疫屏障(常驻炎症细胞)。
▸ 与肠道炎症相关的疾病
急性回肠炎或结肠炎的发作通常与感染(病毒、细菌、真菌或寄生虫)相关。然而,在某些情况下,急性回肠炎或结肠炎可能是慢性炎症性疾病的最初表现,这些肠道慢性炎症性疾病包括炎症性肠病(IBD)、乳糜泻和肠易激综合征(IBS)。
▸ 炎症性肠病
炎症性肠病(IBD)是一种慢性肠道炎症性疾病,包括克罗恩病(CD)和溃疡性结肠炎(UC)两个主要亚型,通常表现为腹痛、腹泻和血便。
IBD的病程特点是急性炎症发作(活动期)与缓解期和复发期交替出现。在病因方面,普遍认为IBD是遗传易感性和环境因素共同作用的结果,两者协同导致肠道微生物群落改变和免疫反应失控。
▸ 乳糜泻
乳糜泻是一种遗传性免疫疾病。遗传易感个体摄入含麸质食物后,会发生小肠黏膜炎症和绒毛萎缩。小麦面筋蛋白和麦胶蛋白富含谷氨酰胺和脯氨酸,使其对蛋白酶降解具有抗性,在小肠内形成免疫原性大肽。然而,这些肽的存在并不足以引发疾病;患者还必须携带位于DQ位点的特定HLA II类基因。这种遗传易感性使肠道组织更易受到食物诱发的炎症因子影响。
▸ 肠易激综合征
肠易激综合征是一种伴有排便习惯改变的慢性腹痛综合征,尚未发现明确的结构异常或炎症细胞浸润。多项研究探讨了炎症征象与该综合征的关联性。部分研究显示抗炎治疗(如美沙拉嗪)未能缓解肠易激综合征症状,提示炎症可能并非症状成因。
然而,大多数肠易激综合征患者存在免疫细胞激活增强的证据。这些免疫细胞包括在患者结肠组织中发生脱颗粒的肥大细胞,以及在结肠活检中上调的多种促炎介质(组胺、多不饱和脂肪酸代谢物、蛋白酶)。因此,充分证据表明肠易激综合征可视为一种低度慢性肠道炎症性疾病,虽然炎症细胞浸润并非显著特征,但可能存在组织功能紊乱和黏膜稳态改变。
▸ 肠道炎症涉及的分子机制
肠道黏膜炎症状态的共同特征包括微生物群生物膜失调、上皮功能障碍、先天免疫细胞浸润和适应性免疫激活。
肠道炎症患者存在微生物群失调
虽然IBD、乳糜泻或IBS中的微生物群失调可能呈现不同的分类特征,难以识别共同的微生物分子机制,但所有炎症状态均表现出微生物物种多样性和丰富性的减少。
紧密连接分子降解和黏液产生减少
屏障功能改变是另一共同特征。肠道上皮细胞紧密连接分子(如Zonulin和occludin)的降解以及杯状细胞黏液产生减少均与肠道炎症相关。潘氏细胞和肠上皮细胞表达分泌的抗菌肽是肠道屏障功能的重要组成部分,在炎症时功能下降。
α-和β-防御素、溶菌酶以及elafin和分泌型白细胞蛋白酶抑制剂等抗菌肽蛋白酶抑制剂在炎症组织中表达下调。因此,促进紧密连接分子、黏液蛋白和抗菌肽的表达和功能有助于增强肠道屏障功能,被视为治疗炎症的有效方法。
微生物群失调和屏障功能改变共同促进肠道慢性炎症
微生物群失调与屏障功能改变导致微生物对组织的异常暴露增加,引起先天免疫细胞深度激活。活化的巨噬细胞吞噬微生物成分,通过Toll样受体9、磷酸二酯酶4和Janus激酶(JAK)等信号机制释放肿瘤坏死因子α(TNF-α)、白细胞介素(IL)-6、IL-12和IL-23,这些炎症介质和信号通路均被视为治疗慢性炎症的重要分子靶标。
组织损伤或侵袭激活后,肥大细胞、巨噬细胞和中性粒细胞共同释放储存在颗粒中的分子,包括炎症脂质介质(如前列腺素和白三烯)、活性氧(ROS)和蛋白酶,这些均构成炎症治疗的分子靶标。肠上皮细胞同样促进炎症性肠黏膜释放这些介质。
与慢性肠道炎症相关的机制
Deraison C,et al.Annu Rev Pharmacol Toxicol.2025
1
麸质——乳糜泻或麸质敏感人群的炎症
麸质蛋白是小麦、大麦、黑麦和燕麦的主要储能蛋白,位于谷物胚乳中,由麦谷蛋白和醇溶谷蛋白以1:1比例构成。
麸质会引起乳糜泻和麸质敏感患者炎症
麸质会导致乳糜泻和非乳糜泻麸质敏感性(NCGS)患者的炎症。乳糜泻是一种麸质自身免疫反应,表现为肠组织结构破坏、胃肠道不适及肠外症状(如皮疹和贫血)。
人群筛查显示乳糜泻为最常见的慢性胃肠道疾病之一,但因临床表现多样且模糊,绝大多数患者仍未被识别。虽然吸收不良和胃肠道症状较为人知,但多数患者实际表现为肠外症状,可累及神经系统、肝脏、皮肤、生殖和肌肉骨骼系统等全身器官,且可在不同年龄出现,更难确定诊断。
麸质会激活肠道肥大细胞并释放促炎分子
麸质与肠道CXCR3受体结合促进zonulin释放,引发易感个体肠道炎症。Zonulin分解上皮细胞间紧密连接蛋白,增加肠通透性和炎症。麸质还激活肠道肥大细胞释放组胺和类胰蛋白酶等促炎分子,使炎症持续存在。
需要注意的是,麸质并非对所有人都引起炎症。无乳糜泻或无非乳糜泻麸质敏感性(NCGS)的人通常能耐受饮食中的麸质。
注:多数晚期肠外表现可通过乳糜泻早期诊断预防。提高诊断率的方法是筛查高危人群,但无麸质饮食维持困难、社会限制且昂贵,可能降低生活质量,特别是症状轻微的患者。然而,证据表明即使无症状成年人也可能已有晚期组织学病变并从饮食治疗中获益,且诊断延迟会增加临床反应不良风险。
2
工业种子油
从大豆、玉米、油菜籽、棉籽和红花籽提取的高度加工工业籽油在标准饮食中占主要份额。这些油不到两个世纪前才引入人类饮食,与一些人体进化不匹配,会促进肠道炎症。
工业种子油烹饪会产生促炎产物
工业种子油富含ω-6脂肪酸,易受光和热损害。用其加工烹饪产生氧化炎症副产品,食用后引起肠道炎症。研究发现,富含工业种子油的饮食不仅会引起肠道炎症,还促进肠道病原体生长。
脂质饮食对肠道微生物群多样性的影响
doi: 10.3390/nu11020418.
脂质是哺乳动物正常发育和生存必需品,其化学性质细微差别影响生理和炎症反应。
不同的膳食脂质会影响肠道微生物群,可能促炎
研究显示饮食脂质对肠道微生物的影响:乳脂和玉米油饮食增加微生物多样性,橄榄油效果与低脂饮食相似;饮食脂质解释80.8%的微生物变异,形成三个不同聚类群;不同脂质类型特异性塑造肠道微生物群落。
总的来说,单不饱和脂肪酸消费与健康益处相关,包括降低消化系统癌症、2型糖尿病和炎症性肠病(IBD)发病率,橄榄油饮食可有效预防小鼠结肠炎。相比之下,虽然北美膳食指南推荐植物籽油中的ω-6多不饱和脂肪酸,但过量摄入是人类IBD风险因素,研究证实其加剧鼠结肠炎。
对于存在于乳制品和椰子油中的饱和脂肪酸,虽然数十年来被批评对健康不利,但欧洲前瞻性队列研究发现牛奶消费与IBD风险降低相关。然而,饲喂饱和脂肪酸通过与胆汁酸结合促进沃氏嗜胆菌(Bilophila wadsworthii)生长,增加IL-10-/-小鼠自发性结肠炎。但动物脂肪成分如丁酸具有抑制炎症、防止DSS-结肠炎和刺激结肠修复的作用。
3
非细胞碳水化合物
非细胞碳水化合物是指缺乏细胞壁的高碳水化合物密度食物,如面粉和糖,在饮食中大量存在并促进炎症性肠道微生物群。相比之下,细胞碳水化合物是含完整细胞的碳水化合物食物,如红薯和整个水果,通过促进抗炎肠道细菌生长来促进肠道健康。
doi: 10.2147/DMSO.S33473. Epub 2012 Jul 6.
现代食品中的无细胞致密碳水化合物从口腔开始产生炎症微生物群,最初引起牙周病。小肠暴露于口腔微生物群的脂多糖和其他病原体相关分子模式,并通过无细胞碳水化合物调节自身小细菌群的促炎性。膳食脂肪增强全身吸收后,炎症细菌化合物诱导瘦素抵抗和过度进食。
4
食品添加剂
超加工食品日益增多且含有大量食品添加剂。大多数添加剂缺乏长期安全性研究,而越来越多证据表明其对肠道炎症有害。
食品添加剂促进促炎细菌生长并增加肠道通透性
人造甜味剂三氯蔗糖刺激炎症肠道细菌的生长。海藻多糖角叉菜胶因其增稠和乳化特性被使用,但会加剧炎症性肠病。常见食品乳化剂羧甲基纤维素和聚山梨酯-80增加肠道通透性。增白剂二氧化钛在肠道引起炎症细胞因子反应。为防止肠道炎症,避免或减少这些普遍存在的食品添加剂应是首要任务。
5
剖腹产和配方奶喂养
剖腹产和奶粉喂养婴儿更易患肠道炎症
剖腹产深刻改变发育中婴儿肠道,用环境微生物而非母亲阴道有益微生物接种微生物组。剖腹产婴儿还通过胎盘循环暴露于预防术后感染的抗生素。这种早期抗生素暴露进一步扭曲婴儿肠道微生物群发育,使孩子易患肠道炎症和哮喘、肥胖等慢性炎症性疾病。
配方奶粉喂养对脆弱婴儿肠道同样可能有害。配方奶喂养的婴儿具有较高水平的促炎细菌类γ-变形菌门,增加肠道通透性和总细菌负荷。相反,母乳喂养增加婴儿肠道抗炎乳酸杆菌和双歧杆菌定植,降低肠道炎症和慢性炎症性疾病风险。
6
肠道感染
细菌、病毒、真菌和寄生虫等各类病原体引起的肠道感染会显著改变肠道微生物群的正常组成结构,从而创造出一个促进炎症反应的肠道内环境。
细菌和病原体感染会变相增加一些促炎细菌丰度
例如,甲型流感病毒感染过程中会通过多种机制减少具有保护作用的肠道有益细菌数量,这种保护性细菌的减少会瞬时性地增加机体对沙门氏菌属等致病菌的易感性,使患者更容易发生继发性细菌感染。
与此同时,幽门螺杆菌这种常见的胃部致病菌在感染过程中不仅会直接损害胃黏膜,还会通过复杂的相互作用机制增强普雷沃氏菌这种典型促炎细菌在肠道中的生长和繁殖能力。
食物中毒也会促进肠道炎症反应
此外,急性食物中毒事件除了造成胃肠道症状外,还可能通过刺激肠道免疫系统产生针对自身组织的炎症性自身抗体,这些异常的免疫反应不仅会引发持续性的肠道炎症状态,还可能进一步发展为肠易激综合征等功能性肠道疾病。
7
压力
人类的肠道对慢性压力非常敏感。糖皮质激素水平的长期升高驱动肠神经胶质细胞的炎症亚群的产生,通过集落刺激因子-1(CSF-1)促进单核细胞和TNF介导的炎症。此外,糖皮质激素通过TGF-β2引起肠神经元的转录不成熟、乙酰胆碱缺乏和运动障碍。
压力促使脂多糖进入血液导致炎症
慢性心理压力还会增加肠道通透性,并允许脂多糖(LPS),一种炎症细菌的副产物,进入血液循环;这会导致局部和全身炎症反应。应激还消耗保护性肠道粘膜层,并增加细菌粘附和渗透到肠上皮细胞中,引起肠道炎症。
不同居住条件下心理压力对肠道炎症的加剧作用
DOI: 10.1016/j.cell.2023.05.001
糖皮质激素治疗结肠炎的效果与心理压力相关
压力会导致炎症性疾病,而心理压力的典型全身介质——儿茶酚胺和糖皮质激素通常被认为具有抗炎作用。由于糖皮质激素受体激动剂泼尼松用于治疗IBD患者结肠炎,糖皮质激素信号传导诱导炎性肠神经胶质细胞和结肠炎恶化尤其令人困惑。
例如,长期压力或地塞米松治疗可能因负反馈抑制下丘脑-垂体-肾上腺轴而导致肾上腺皮质酮生产不足。然而,急性糖皮质激素受体抑制的有益作用与”肾上腺抑制”不符。或者,糖皮质激素抗炎和促炎作用间的平衡可能是暂时现象。
虽然急性糖皮质激素治疗改善DSS诱导的结肠炎,研究团队还发现持续升高的皮质酮水平有助于eGAPS的出现和产生TNF的单核细胞的积累。同样,临床观察已经证明,只有短期类固醇治疗才能在IBD中产生有益的结果。所以还是要强调了在炎症性疾病的临床管理中考虑患者心理健康的重要性,治疗效果可能因受影响个体的心理状态而异。
因此,心理状态的评估,结合减少压力,焦虑和抑郁的策略,可能是一个强大的和未充分利用的工具,以提高治疗的成功。
8
久坐不动的生活方式和过度训练
适量运动有助于促进抗炎细菌的生长
适度的运动可以促进有益的肠道细菌,包括产生抗炎性短链脂肪酸(SCFA)的细菌,如梭状芽孢杆菌属、罗氏菌属、毛螺菌属等,从而抑制肠道炎症。相反,久坐不动的生活方式与炎症分子向肠道的渗透增加有关。
然而,运动也并非越多越好。过度的体力活动会增加肠道通透性,对肠道微生物群产生负面影响。如果您患有慢性炎症性疾病或承受严重心理压力,应避免剧烈运动,专注于散步、瑜伽或游泳等温和活动。
9
昼夜节律紊乱和睡眠不足
昼夜节律是以约24小时为周期的内部生化过程,调节包括肠道健康和炎症在内的多项生理功能。当夜间蓝光照射和不规律睡眠等因素干扰昼夜节律时,会促进炎性肠道细菌生长,减少有益微生物,并增加肠道通透性和脂多糖向体循环的转运。
睡眠不足与昼夜节律紊乱促进炎性细菌增长
睡眠不足与昼夜节律紊乱密切相关,对肠道健康同样有害。仅两个晚上的部分睡眠剥夺就能改变肠道微生物群,增加促炎细菌种类,并加剧IBD的肠道炎症。因此,维持正常昼夜节律和充足睡眠对减少肠道炎症至关重要。
10
滥用抗生素
临床医生频繁开处抗生素会给患者带来虚假安全感,轻易就开抗生素已成为社会常态,但其对肠道健康的影响往往被低估。大量研究表明,抗生素可能对肠道微生物群产生长期有害影响,并诱导肠道炎症。
抗生素减少肠道菌群的多样性并导致肠道功能紊乱
抗生素会减少肠道共生细菌的多样性和丰度,使埃希氏菌和念珠菌等条件性致病菌过度生长,抗生素还增加了拟杆菌门/厚壁菌门的比率。抗生素对厌氧菌具有特异性,厌氧菌在人体肠道微生物群中占主导地位并发挥重要作用。克林霉素就是一个例子,这是一种相对广谱的抗生素,主要针对厌氧菌。克林霉素对肠道微生物群有很大的负面影响,表现为对病原体定植的抵抗力降低,导致艰难梭菌过度生长导致伪膜性结肠炎的高风险。克林霉素对肠道菌群的其他影响是胃炎和腹泻。正常肠道功能紊乱可导致腹胀和肠痛等症状。
抗生素可能导致长期的生态失调和肠道免疫下降
抗生素处理的微生物组释放岩藻糖和唾液酸等粘膜碳水化合物。这些物质水平的增加有利于机会性病原体鼠伤寒沙门氏菌和艰难梭菌在肠道内的扩张。肠出血性大肠埃希菌也被证明可以获取肠道微生物群从粘蛋白中释放的岩藻糖或唾液酸。
兵器抗生素导致的微生物的变化可以在停止使用抗生素后持续数月或数年。它们的不良影响在婴儿和幼儿中最为明显,他们正在经历肠道微生物群发育的关键时间窗口。
更令人担忧的是,耐药细菌在接触抗生素后会变得更具炎症性。抗生素还会增加肠道通透性,降低肠道天然免疫防御,从而间接促进肠道炎症。
11
非抗生素药物
除了抗生素会影响肠道微生态外,越来越多的证据表明普通常见药物也会对人体肠道健康产生影响。
胃肠道药物和抗抑郁药物对肠道微生态的影响尤为显著
质子泵抑制剂(PPI)用于治疗胃食管反流病和胃酸反流,通过减少胃酸产生来发挥作用。正常情况下,充足的胃酸能限制环境细菌进入肠道。PPI抑制胃酸产生后,更多细菌得以进入消化道并在小肠中增殖,导致细菌过度生长和肠道炎症,同时竞争资源减少产生抗炎短链脂肪酸的有益细菌生长。
选择性5-羟色胺再摄取抑制剂(SSRIs)除了引起便秘和食欲变化外,也会干扰正常的肠道微生物群结构。临床前研究表明氟西汀(百忧解)会抑制乳酸杆菌生长,同时显著增加Alistipes、各种Lachnospiraceae OTU、Lachnoclostridium和Anaerotruncus等菌属的丰度,从而加剧肠道菌群失调。
口服避孕药也会引发肠道炎症。事实上,它们的使用与克罗恩病(IBD的一种亚型)的风险增加有关。
12
环境毒素
工业界每年开发数千种新化学品,但现有环境化学品已造成的一系列健康危害。
环境毒素也会导致有害细菌增加并引发肠道炎症
肠道炎症是环境毒素暴露的最常见后果之一。双酚A(BPA)广泛存在于塑料水瓶、食品容器、儿童玩具和收银机收据中,通过增加有害肠道细菌和肠道通透性来促进肠道炎症。不含BPA产品中的替代增塑剂同样有害,甚至危害更大。
三氯生是洗手液和个人护理产品中使用的合成抗菌剂,也会加重肠道炎症。草甘膦作为农达除草剂的主要成分,能减少乳酸杆菌并促进耐除草剂大肠杆菌生长,表明其在肠道微生物组中发挥抗生素作用。
发炎的肠道会显著增加患多种慢性疾病的风险,包括炎症性肠病(IBD)和结肠癌等消化系统疾病,以及自闭症和阿尔茨海默病等神经系统疾病。肠道炎症作为一个关键的病理过程,与这些严重健康问题的发生和发展密切相关。
因此,积极阻止肠道炎症的发生和进展,对于有效预防这些慢性疾病的出现以及成功管理已有慢性疾病的症状和进程都具有至关重要的意义。通过控制肠道炎症,我们能够从根本上降低患病风险,改善整体健康状况。
1
过敏
促炎细胞因子会刺激诱导过敏性炎症
肠道炎症可能导致季节性过敏。有益和有害肠道微生物失衡会增加肠道促炎细胞因子的释放,这些细胞因子刺激肥大细胞、嗜碱性粒细胞和嗜酸性粒细胞活性,诱导过敏性炎症。生态失调相关的肠道炎症还与特应性皮炎和食物过敏密切相关。
相反,健康的肠道通过释放抗炎短链脂肪酸和调节性T细胞来抑制过敏性致敏,维持免疫平衡。
肠道微生物群与免疫系统之间的相互作用
doi: 10.3389/fimmu.2018.01584.
2
自身免疫性疾病
肠道屏障受损在免疫性疾病中发挥重要作用
肠道炎症是自身免疫性疾病发展的先导因素。1型糖尿病患者的循环脂多糖水平更高。Zonulin是肠道屏障受损时释放的蛋白质,自身免疫性疾病患者的Zonulin水平明显高于健康对照组,表明肠漏在自身免疫性疾病中发挥重要作用。
麸质敏感性和慢性应激是肠道炎症的两个主要触发因素,通常在自身免疫疾病发生之前出现。
3
关节炎
口腔和肠道微生物群发生炎症性改变时,会对关节炎的发生和进展产生重要影响。这些微生物群的改变主要表现为致龋细菌牙龈卟啉单胞菌的异常过度生长,同时伴随着有益细菌数量的显著减少,这种微生物失衡状态与关节炎病情的恶化和进展密切相关。
生态失调引起促炎细胞因子释放,导致关节和肌肉病理性改变
当肠道出现生态失调和肠道屏障功能受损导致肠道渗漏时,会在体内诱导广泛的全身性炎症反应。这种炎症反应会触发多种促炎细胞因子的大量释放,这些细胞因子进入循环系统后会直接作用于肌肉骨骼系统,最终导致关节、肌肉和骨骼组织的退化性改变。
有益的抗炎细菌和短链脂肪酸有助于减轻关节炎
然而,与此形成鲜明对比的是,当肠道中存在充足的抗炎细菌和短链脂肪酸时,这些有益成分已被科学研究证实能够有效减轻关节炎症状的严重程度,并且具有预防和阻止骨质流失的保护作用。
4
胃肠道疾病
炎症性肠病(IBD)
肠道炎症是炎症性肠病(IBD)的一个关键特征,包括溃疡性结肠炎和克罗恩病。一系列有害的肠道变化,包括生态失调和肠道通透性增加,会促进IBD的进展。
肠易激综合征(IBS)
科学研究已经深入阐明了肥大细胞在肠易激综合征(IBS)发病机制中发挥的关键作用。肥大细胞作为一类重要的免疫细胞,能够释放多种刺激性化合物,其中组胺是最主要的介质之一。这些刺激性化合物的释放会引起肠道组织的炎症反应,而持续存在的低度炎症状态在IBS的病理过程中扮演着至关重要的角色,直接影响着疾病的发生和发展进程。
在临床表现为腹泻为主的IBS或者混合型IBS的患者群体中,自身免疫机制同样可能在肠道炎症的产生和维持过程中发挥重要作用。特别是在这些特定类型的IBS病例中,患者既往经历的食物中毒事件可能会成为一个重要的触发因素。这些食物中毒事件会刺激机体的免疫系统产生异常的免疫反应,最终导致机体产生能够直接损害和攻击胃肠道组织的自身抗体,从而加重肠道的炎症状态和功能紊乱。
长期的肠道炎症会增加结直肠癌风险
结直肠癌是一种严重威胁人类健康的恶性肿瘤,其发病率和死亡率都相当高。大量的科学研究证据清楚地表明,预先存在的胃肠道炎症状态往往在结直肠癌的发生和发展过程中起到先导作用,也就是说肠道炎症通常会在结直肠癌实际形成之前就已经出现。
通过深入的研究分析,科学家们已经成功确定了多种能够引发结直肠癌发生的炎症触发因素。包括各种有害的肠道病原体感染,肠道内负责产生丁酸盐的有益细菌数量处于异常低下的水平,以及长期摄入高度加工和精制的典型西方饮食模式,这些因素都会通过不同的机制促进肠道炎症的发生,进而增加结直肠癌的患病风险。
肠道炎症还会引发憩室炎
憩室炎是一种肠壁刺激,由肠道炎症引发。其特征在于结肠中的生态失调和粪便钙卫蛋白升高,这是当胃肠道中存在活动性炎症时由白细胞释放的蛋白质。
5
心血管疾病
心血管疾病(CVD)是全球死亡的主要原因,药物和手术是传统医疗的基石。然而,越来越多的证据表明肠道和心脏健康之间存在重要联系,肠道靶向治疗可能是未来CVD的治疗方法。
生态失调会促进斑块形成和高血压
肠道内多种炎症过程影响心血管疾病的病程。生态失调通过释放脂多糖和肽聚糖等革兰氏阴性和阳性细菌的炎性细胞壁成分,促进动脉粥样硬化斑块形成和高血压,从而导致心血管疾病。菌群失调还会影响胆汁酸代谢,损害胆固醇和甘油三酯等血脂的排泄。
6
抑郁和焦虑
最新的科学研究表明,免疫系统在抑郁症和焦虑症的发生和发展过程中起着至关重要的作用。考虑到人类肠道系统拥有约70%的免疫细胞和免疫组织,集中了机体免疫系统的绝大部分功能,因此肠道内发生的炎症反应会对心理健康状态产生显著而深远的影响也就完全不足为奇了。
肠道炎症通过肠-脑轴诱导大脑产生神经炎症反应
肠-脑轴是连接肠道肠神经系统和中枢神经系统之间的一个复杂的双向信号传递网络系统,这个重要的生理网络在介导和调节肠道炎症状态与心理健康水平之间的密切关系方面发挥着关键作用。
当肠道内出现各种炎症刺激时,这些炎症信号会通过肠-脑轴这一重要通道向大脑传送相关信息,从而在大脑组织内诱导产生神经炎症反应,并且显著改变和影响各种神经递质的正常合成和分泌过程。这些深层次生化变化所带来的直接后果就是大脑神经活动模式发生异常改变,最终表现为抑郁症和焦虑症等精神心理疾病的临床症状。
抑郁症和焦虑症患者对抗肠道炎症的能力减弱
这种具有炎症特征的肠-脑轴信号传导异常主要是由肠道微生物群的生态失调状态和肠道屏障功能的严重障碍所触发和维持的,而这两种病理状态在患有抑郁症和焦虑症的患者群体中表现得极为常见和普遍。同时,患有抑郁症和焦虑症的人群还表现出对抗肠道炎症能力的明显降低和减弱,这种抗炎能力的下降主要是由于肠道内具有抗炎作用的短链脂肪酸水平显著降低所导致的。
7
神经系统疾病
肠道炎症可能是神经退行性疾病的“驱动器”
肠-脑轴在神经退行性疾病中发挥关键作用。肠道炎症被认为是帕金森病的”沉默驱动器”,可在症状出现前持续长达二十年。研究还发现,肠源性炎症反应促进淀粉样蛋白-β斑块沉积,导致阿尔茨海默病中的神经元变性和认知功能障碍。
自闭症、多动症患者菌群多样性减少,存在肠道炎症
神经发育障碍在全球患病率急剧上升;自闭症患病率已达到每59名儿童中有1名,截至2016年,11%的儿童和青少年被诊断为注意力缺陷/多动障碍(ADHD)。小儿急性发作性神经精神综合征(PANS)和链球菌感染相关的小儿自身免疫性神经精神障碍(PANDAS)是以抽搐和强迫症突然发作为特征的新兴神经发育障碍。
研究表明,生态失调和肠道炎症是这些疾病的共同致病因素。ADHD儿童表现出肠道微生物α多样性降低,即肠道细菌种类减少;而较高的多样性通常与更好的健康结果相关。自闭症谱系儿童和PANS/PANDAS儿童同样表现出生态失调。这些炎症变化改变了肠-脑信号传导,最终导致神经行为缺陷。
8
骨质疏松
肠道炎症会影响维生素D、钙的吸收
几条证据表明肠道炎症通过破坏骨生成和骨吸收细胞之间的平衡,导致骨量净损失,从而促进骨质疏松症。肠道炎症也会减少对关键的骨骼构建营养素的吸收,包括维生素D,钙和镁。
9
皮肤健康
肠道及其微生物通过肠-皮肤轴影响皮肤健康
我们已经写了许多关于肠道和皮肤健康之间联系的文章,由肠道-皮肤轴介导。就像肠-脑轴一样,肠-皮肤轴是一个连接肠道及其微生物与皮肤的信号分子网络。
肠道的炎症变化,包括生态失调和肠道通透性增加,与一系列皮肤病有关,包括痤疮、牛皮癣、红斑痤疮和湿疹。
10
代谢性疾病
肠道炎症和代谢失调之间存在双向加剧作用
代谢综合征、2型糖尿病(T2D)、肥胖症和肠道炎症之间形成了一个复杂而有害的恶性循环机制:血糖调节失调状态和体内过量脂肪组织的积累会显著促进肠道内炎症反应的发生和发展,而肠道炎症状态反过来又会进一步加剧和恶化机体的代谢功能障碍,从而形成一个持续恶化的病理生理过程。
肠道微生态失调会促进胰岛素抵抗和瘦素抵抗
肠道微生物生态系统的失调状态以及循环系统中脂多糖水平的升高共同诱导和促进胰岛素抵抗和瘦素抵抗的发生,而这两种激素抵抗现象正是代谢综合征、2型糖尿病和肥胖症发病机制中的关键病理特征和核心环节。
日常饮食中摄入的非纤维性碳水化合物以及环境中存在的各种致肥胖环境毒素暴露(包括双酚A和多种邻苯二甲酸盐化合物)都会对肠道微生物群落的组成和结构产生显著的改变和影响。这些肠道微生物群落的变化和改变会直接引起肠道组织内炎症反应的激活和维持,并且对代谢功能障碍疾病的发生、发展和进展过程产生重要的推动和影响作用。
肠道菌群受损时会驱动非酒精性脂肪性肝病
非酒精性脂肪性肝病(NAFLD)是一种特定的肝脏疾病状态,主要是指在很少饮酒或完全不饮酒的个体中,肝脏组织内出现多余脂肪物质的异常积聚和沉积现象,这种疾病状态与代谢综合征、2型糖尿病(T2D)以及肥胖症等代谢性疾病之间存在着非常密切和重要的关联性。
当肠道微生物群落结构和功能受到损害和破坏时,这种受损的肠道微生物生态系统似乎会成为驱动和促进NAFLD相关炎症反应发生和发展的重要因素和机制。与此相对应的是,各种有益的、针对肠道环境的靶向治疗方法和干预措施,例如通过补充益生菌等方式来调节和改善肠道微生物群落,能够有效地缓解和减轻肝脏组织内的炎症反应以及由此导致的肝脏功能障碍和损害。
肠道炎症作为多种慢性疾病的核心病理机制,其有效治疗需要采用多元化、个体化的综合干预策略。当前的治疗方法主要围绕恢复肠道微生物平衡、修复肠道屏障功能、调节免疫反应以及减少促炎因子等核心目标展开。
这些治疗手段包括但不限于营养干预、益生菌和益生元补充、抗炎药物应用、生活方式调整以及新兴的微生物移植疗法等。通过系统性地结合这些不同的治疗模式,能够从多个层面同时作用于肠道炎症的发病机制,从而实现更加全面和持久的治疗效果,最终改善患者的整体健康状况和生活质量。
1
药物治疗
目前用于治疗慢性肠道炎症的大多数药物要么针对在炎症反应早期阶段(即静息期和血管期)释放的炎症介质,要么针对炎症细胞的招募。
①氨基水杨酸类药物
氨基水杨酸类药物(包括柳氮磺吡啶和5-氨基水杨酸)通过作用于花生四烯酸代谢,抑制前列腺素和白三烯等脂质炎症介质的释放。然而,该类药物还具有其他作用机制,包括清除活性氧、抑制白细胞产生细胞因子、通过芳香烃受体依赖途径诱导调节性T细胞招募,以及与过氧化物酶体增殖物激活受体γ结合。
5-氨基水杨酸用于治疗溃疡性结肠炎,有助于维持病情缓解,但在克罗恩病患者中的应用仍存争议。一项研究显示,5-氨基水杨酸能有效减少乳糜泻患者组织器官型培养中的氧化爆发和炎症,但尚无减少组织炎症的报道。在肠易激综合征患者的研究中,5-氨基水杨酸治疗未能改善症状。
②皮质类固醇
20世纪50年代,皮质类固醇成为治疗IBD的首个药理方法,至今仍能使许多患者获得有效缓解,但其维持缓解的效果尚未得到证实。因此,皮质类固醇用于终止炎症发作和诱导缓解,但不推荐长期使用。
皮质类固醇对所有炎症相关途径的多效性作用解释了其疗效。然而,尽管努力开发更安全、耐受性更好的皮质类固醇,但其使用可能产生显著副作用,包括机会性感染、糖尿病、高血压、静脉血栓栓塞和骨质疏松症。此外,部分患者对皮质类固醇治疗存在抵抗性,必须考虑其他免疫调节方法。
③免疫调节剂
用于治疗肠道炎症的免疫调节剂包括硫唑嘌呤、甲氨蝶呤、钙调磷酸酶抑制剂和Janus激酶抑制剂,所有这些药物都旨在降低T淋巴细胞的活化或增殖,并且在减少炎症发作方面非常有效。然而,它们也引起许多不良反应,包括肝损伤、骨髓抑制和传染病。
④生物制剂
许多治疗肠道炎症(特别是IBD)的生物制剂针对细胞因子或整合素。由于TNF-α、IL-12和IL-23在IBD发病机制中的重要作用,抗TNF-α和抗IL-12/23抗体是治疗IBD的主要生物制剂。
抗TNF-α抗体可抑制炎症反应和组织损伤,用于治疗对皮质类固醇无反应的中重度UC或CD患者。通过剂量递增可实现抗TNF-α抗体的长期缓解。然而,高达40%的患者对TNF-α抑制剂无反应,且在开始治疗后仅1年就有20%-45%的患者出现继发性疗效丧失。因此,抗IL-12和抗IL-23在生物制剂初治和既往治疗患者中均有效,常作为二线治疗使用。
整合素通过与组织特异性细胞黏附分子结合介导白细胞归巢,在炎症细胞向炎症组织招募和滞留中起关键作用。抗整合素治疗通过阻断整合素与白细胞内皮细胞黏附分子或上皮细胞表达的E-钙黏蛋白结合发挥作用。抗整合素生物制剂针对黏附分子的α4或β7整合素亚单位。
所有生物制剂对应答者的缓解诱导效果均很好。然而,尽管具有选择性高、特异性强等优点,仍有相当一部分IBD患者出现原发性无应答、继发性应答丧失和治疗不耐受,因此需要其他治疗选择。
2
微生物群靶向治疗
微生物群失调既是炎症相关肠道病变的常见特征,也是导致长期炎症的早期事件。因此,针对微生物群的治疗是治疗肠道炎症的有前景选择。
微生物干预能够有效改善肠道炎症
基于微生物组的疗法包括饮食干预、益生元补充、单一或多菌株益生菌制剂、噬菌体疗法、粪便微生物群移植(FMT)和微生物组模拟物。多项证据表明针对微生物组的疗法对炎症性肠病、肠易激综合征以及一定程度上的乳糜泻有益。微生物组治疗的作用模式可能是多模态的,涉及直接影响生物膜组成和代谢、控制屏障功能以及影响黏膜免疫。
①微生物群相关修复
多项研究显示益生菌、益生元和后益生元在IBD和IBS患者中的潜在作用。它们安全且耐受性良好,尽管效果有时相当有限。在CD患者中,大多数研究表明益生菌无显著效果,而在UC患者或IBS患者中,对临床症状和缓解有益。
粪菌移植治疗IBD的潜力正被积极研究。在UC患者中,FMT在实现临床缓解方面优于安慰剂,一项关于FMT在IBD患者中疗效的荟萃分析显示,无论CD还是UC,临床缓解率均显著。
②干细胞移植
干细胞作为所有细胞类型的起源,包括上皮细胞,因此用于修复受损肠道组织并恢复功能具有理论依据。在重度难治性克罗恩病患者中,自体造血干细胞移植或同种异体骨髓间充质干细胞治疗均显示出积极效果,约半数患者实现临床缓解。
尽管大多数接受自体造血干细胞移植的患者在术后5年内复发,但80%复发者在再次移植后可重新达到缓解。因此,干细胞移植对CD患者的黏膜修复具有潜力,但其临床应用尚未获批。此外,干细胞移植还可利用自体肠道干细胞,经体外培养和检测后移植,该方法已在动物模型中成功应用,但在人类中的临床条件尚未确定。
③加强屏障功能
屏障功能障碍与肠道炎症密切相关,这种障碍在炎症性肠病、乳糜泻和肠易激综合征患者中均有发现。研究表明,即使炎症消退,屏障功能在之后数周内仍可能受损。清除急性炎症后,屏障功能的恢复是组织修复的关键,涉及黏膜微生物生物膜、黏液层、上皮单层、黏膜免疫系统和神经支配。因此,屏障功能可通过多种方式恢复。一些IBD治疗手段部分通过改善上皮屏障起效,如抗TNF-α治疗对克罗恩病有效。
肠道粘膜表面的解决和修复参与者及介质
Deraison C,et al.Annu Rev Pharmacol Toxicol.2025
临床上,恢复肠道屏障功能主要依赖饮食干预,包括免疫调节营养物、益生菌和微生物代谢产物。局部应用丁酸可改善难治性溃疡性结肠炎患者的屏障功能。新的理论认为,具有细胞功能失常遗传背景者更易发生自身免疫反应,此类细胞对炎症触发因素更为敏感。肠腔内容物常为炎症的主要触发因素,难以完全避免。因此,针对遗传性功能障碍的干预为新型治疗途径。
3
生活方式改善
①吃营养丰富的未经加工的饮食
营养丰富、未经加工的饮食提供了底物(即,可发酵纤维,多酚和其他营养素),你的肠道细菌需要茁壮成长,创造一个抗炎的肠道生态系统。特别关注益生元食物可以提高你的抗炎SCFA产生细菌的水平。避免非细胞碳水化合物,包括精制面粉产品和工业种子油。
对于患有严重肠道炎症的人,如IBD,自身免疫方案饮食可以提供显著的缓解。
②管理压力
慢性压力确实会损害肠道健康,因此压力管理对于减轻肠道炎症至关重要。冥想有助于调节压力反应,维持肠道屏障功能和炎症平衡。规律锻炼和良好睡眠同样有助于管理压力并支持肠道健康。
③控制合理使用药物
为减少肠道炎症,应谨慎使用抗生素和其他药物。目前对非抗生素药物对肠道健康影响的了解有限,但已有初步担忧。相比之下,抗生素对肠道的负面影响证据充分。如果您正在使用PPI,请谨慎使用,并了解如何通过饮食和生活方式调整来减少或停用抑酸药物。
④尽量限制接触毒素
环境毒素无处不在,但通过以下简单措施可以降低暴露并预防肠道炎症:
-购物时避免使用收据,减少接触。
-选择不锈钢或玻璃水瓶和食物容器,避免塑料制品。
–避免在家中和院子里使用杀虫剂。
这些措施有助于减少环境毒素的累积暴露,促进肠道和整体健康。
肠道掌控着全身的健康。从消化吸收到免疫防线,从情绪调节到慢性病预防,你的身体几乎所有系统,都绕不开它的“号令”。一旦肠道炎症悄然来袭,打破屏障和菌群的平衡,导致各种慢性疾病,比如炎症性肠病、结肠癌、糖尿病、哮喘,甚至影响大脑、皮肤和骨骼健康。
不健康饮食(精制碳水、工业油、食品添加剂),还有滥用抗生素、环境毒素、过度压力、久坐、睡眠紊乱、剖腹产及配方喂养、反复肠道感染、甚至是某些常见药物等都会影响肠道炎症。
总之,肠道健康是你和慢病拉开距离的“第一道防线”。面对日常的饮食、作息和环境时,不妨从肠道微生物组学的角度审视:这些是否有利于维持肠道菌群的多样性与稳态?
从丰富多样、天然未加工的饮食入手,善用益生菌和益生元,科学运动,重视深度睡眠,减少压力,限用药物,远离环境毒素,肠道就会回馈你健康的身体和愉悦的心情。而现代医学的营养干预、生物制剂、微生态移植和干细胞等创新治疗,也在不断拓宽肠道炎症的管理边界。
肠道炎症,正走向现代医学的中心,未来,肠道炎症指标将如同血压、血糖一样成为常规监测项目,在疾病症状出现前数年就能识别风险并及时干预。谷禾肠道菌群检测为这一转变提供了强有力的技术支撑,通过分析肠道微生物组成和功能,基于大样本量数据库及最新的算法模型,评估肠道炎症水平。健康管理也正从症状出现后治疗向风险早期识别的根本转变。通过持续的肠道健康监测和精准干预,我们能够预防很多慢性疾病。
面对肠道炎症的复杂病理机制,未来的医疗模式将迎来跨学科融合,整合营养学、微生物学和免疫学等多学科知识,基于个体化检测结果制定多维度干预策略,为患者提供系统化解决方案。
主要参考文献
Pelaseyed T, Bergström JH, Gustafsson JK, Ermund A, Birchenough GM, Schütte A, van der Post S, Svensson F, Rodríguez-Piñeiro AM, Nyström EE, Wising C, Johansson ME, Hansson GC. The mucus and mucins of the goblet cells and enterocytes provide the first defense line of the gastrointestinal tract and interact with the immune system. Immunol Rev. 2014 Jul;260(1):8-20.
Ohno H. Intestinal M cells. J Biochem. 2016 Feb;159(2):151-60.
Gassler N. Paneth cells in intestinal physiology and pathophysiology. World J Gastrointest Pathophysiol. 2017 Nov 15;8(4):150-160.
Bäckhed F, Ley RE, Sonnenburg JL, Peterson DA, Gordon JI. Host-bacterial mutualism in the human intestine. Science. 2005 Mar 25;307(5717):1915-20.
Gill SR, Pop M, Deboy RT, Eckburg PB, Turnbaugh PJ, Samuel BS, Gordon JI, Relman DA, Fraser-Liggett CM, Nelson KE. Metagenomic analysis of the human distal gut microbiome. Science. 2006 Jun 2;312(5778):1355-9.
Qin J, Li R, Raes J, Arumugam M, Burgdorf KS, Manichanh C, Nielsen T, Pons N, Levenez F, Yamada T, Mende DR, Li J, Xu J, Li S, Li D, Cao J, Wang B, Liang H, Zheng H, Xie Y, Tap J, Lepage P, Bertalan M, Batto JM, Hansen T, Le Paslier D, Linneberg A, Nielsen HB, Pelletier E, Renault P, Sicheritz-Ponten T, Turner K, Zhu H, Yu C, Li S, Jian M, Zhou Y, Li Y, Zhang X, Li S, Qin N, Yang H, Wang J, Brunak S, Doré J, Guarner F, Kristiansen K, Pedersen O, Parkhill J, Weissenbach J; MetaHIT Consortium; Bork P, Ehrlich SD, Wang J. A human gut microbial gene catalogue established by metagenomic sequencing. Nature. 2010 Mar 4;464(7285):59-65.
Laurikka P, Nurminen S, Kivelä L, Kurppa K. Extraintestinal Manifestations of Celiac Disease: Early Detection for Better Long-Term Outcomes. Nutrients. 2018 Aug 3;10(8):1015.
Sturgeon C, Fasano A. Zonulin, a regulator of epithelial and endothelial barrier functions, and its involvement in chronic inflammatory diseases. Tissue Barriers. 2016 Oct 21;4(4):e1251384.
Frossi B, De Carli M, Calabrò A. Coeliac Disease and Mast Cells. Int J Mol Sci. 2019 Jul 11;20(14):3400.
Losurdo G, Piscitelli D, Pezzuto F, Fortarezza F, Covelli C, Marra A, Iannone A, Amoruso A, Principi M, Ierardi E, Di Leo A. T Helper Lymphocyte and Mast Cell Immunohistochemical Pattern in Nonceliac Gluten Sensitivity. Gastroenterol Res Pract. 2017;2017:5023680.
Abulizi N, Quin C, Brown K, Chan YK, Gill SK, Gibson DL. Gut Mucosal Proteins and Bacteriome Are Shaped by the Saturation Index of Dietary Lipids. Nutrients. 2019 Feb 16;11(2):418.
Spreadbury I. Comparison with ancestral diets suggests dense acellular carbohydrates promote an inflammatory microbiota, and may be the primary dietary cause of leptin resistance and obesity. Diabetes Metab Syndr Obes. 2012;5:175-89.
Martínez Steele E, Baraldi LG, Louzada ML, Moubarac JC, Mozaffarian D, Monteiro CA. Ultra-processed foods and added sugars in the US diet: evidence from a nationally representative cross-sectional study. BMJ Open. 2016 Mar 9;6(3):e009892.
Nickerson KP, McDonald C. Crohn’s disease-associated adherent-invasive Escherichia coli adhesion is enhanced by exposure to the ubiquitous dietary polysaccharide maltodextrin. PLoS One. 2012;7(12):e52132.
Rodriguez-Palacios A, Harding A, Menghini P, Himmelman C, Retuerto M, Nickerson KP, Lam M, Croniger CM, McLean MH, Durum SK, Pizarro TT, Ghannoum MA, Ilic S, McDonald C, Cominelli F. The Artificial Sweetener Splenda Promotes Gut Proteobacteria, Dysbiosis, and Myeloperoxidase Reactivity in Crohn’s Disease-Like Ileitis. Inflamm Bowel Dis. 2018 Apr 23;24(5):1005-1020.
Braniste V, Jouault A, Gaultier E, Polizzi A, Buisson-Brenac C, Leveque M, Martin PG, Theodorou V, Fioramonti J, Houdeau E. Impact of oral bisphenol A at reference doses on intestinal barrier function and sex differences after perinatal exposure in rats. Proc Natl Acad Sci U S A. 2010
JPascal M, Perez-Gordo M, Caballero T, Escribese MM, Lopez Longo MN, Luengo O, Manso L, Matheu V, Seoane E, Zamorano M, Labrador M, Mayorga C. Microbiome and Allergic Diseases. Front Immunol. 2018 Jul 17;9:1584. an 5;107(1):448-53.
Mao, Q., Manservisi, F., Panzacchi, S. et al. The Ramazzini Institute 13-week pilot study on glyphosate and Roundup administered at human-equivalent dose to Sprague Dawley rats: effects on the microbiome. Environ Health 17, 50 (2018).
Han H, Li Y, Fang J, Liu G, Yin J, Li T, Yin Y. Gut Microbiota and Type 1 Diabetes. Int J Mol Sci. 2018 Mar 27;19(4):995.
Chen, J., Chia, N., Kalari, K. et al. Multiple sclerosis patients have a distinct gut microbiota compared to healthy controls. Sci Rep 6, 28484 (2016).