-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
炎症性肠病(IBD)主要包括克罗恩病(CD)和溃疡性结肠炎(UC)。虽然其主要病变位于胃肠道,但IBD并非单纯的局部肠道疾病。持续的免疫炎症反应还可能累及皮肤、关节、眼睛及肝胆系统等,形成多种肠外表现(extraintestinal manifestations,EIMs)。
皮肤是IBD常见的肠外受累部位之一。 研究报道,约6%–10%的IBD患者存在相关皮肤表现,部分队列报告的比例可达10%–30%。这意味着,皮肤问题并不是IBD病程中偶然出现的伴随症状,而是值得临床关注的重要表现。
皮肤疾病不仅临床表现不同,与肠道炎症活动的关系也存在明显差异。
例如,结节性红斑通常与肠道疾病活动密切相关,而坏疽性脓皮病可能在肠道炎症得到控制后仍持续存在。部分皮肤病变甚至可能在IBD确诊之前出现。另一方面,治疗IBD的生物制剂虽然能够控制炎症,却也可能诱发新的银屑病样皮损等反常性皮肤反应。
因此,IBD相关皮肤表现并不能简单理解为肠道炎症在皮肤上的延伸。不同疾病可能涉及共同的遗传易感因素和免疫炎症通路,但其具体发生机制、临床病程及治疗反应又不完全相同。
那么,肠道与皮肤之间究竟存在怎样的免疫联系?为什么同样患有IBD,不同患者却可能出现截然不同的皮肤表现?
本文总结了IBD相关皮肤疾病的临床特征、诊断及治疗策略,并从遗传易感性、免疫炎症通路、淋巴细胞迁移和肠道微生物群等方面,探讨肠道炎症与皮肤病变之间的潜在联系。
理解这些皮肤表现的临床差异及其潜在机制,有助于提高IBD相关皮损的早期识别和鉴别诊断能力,并为兼顾肠道与皮肤炎症的治疗决策提供参考。
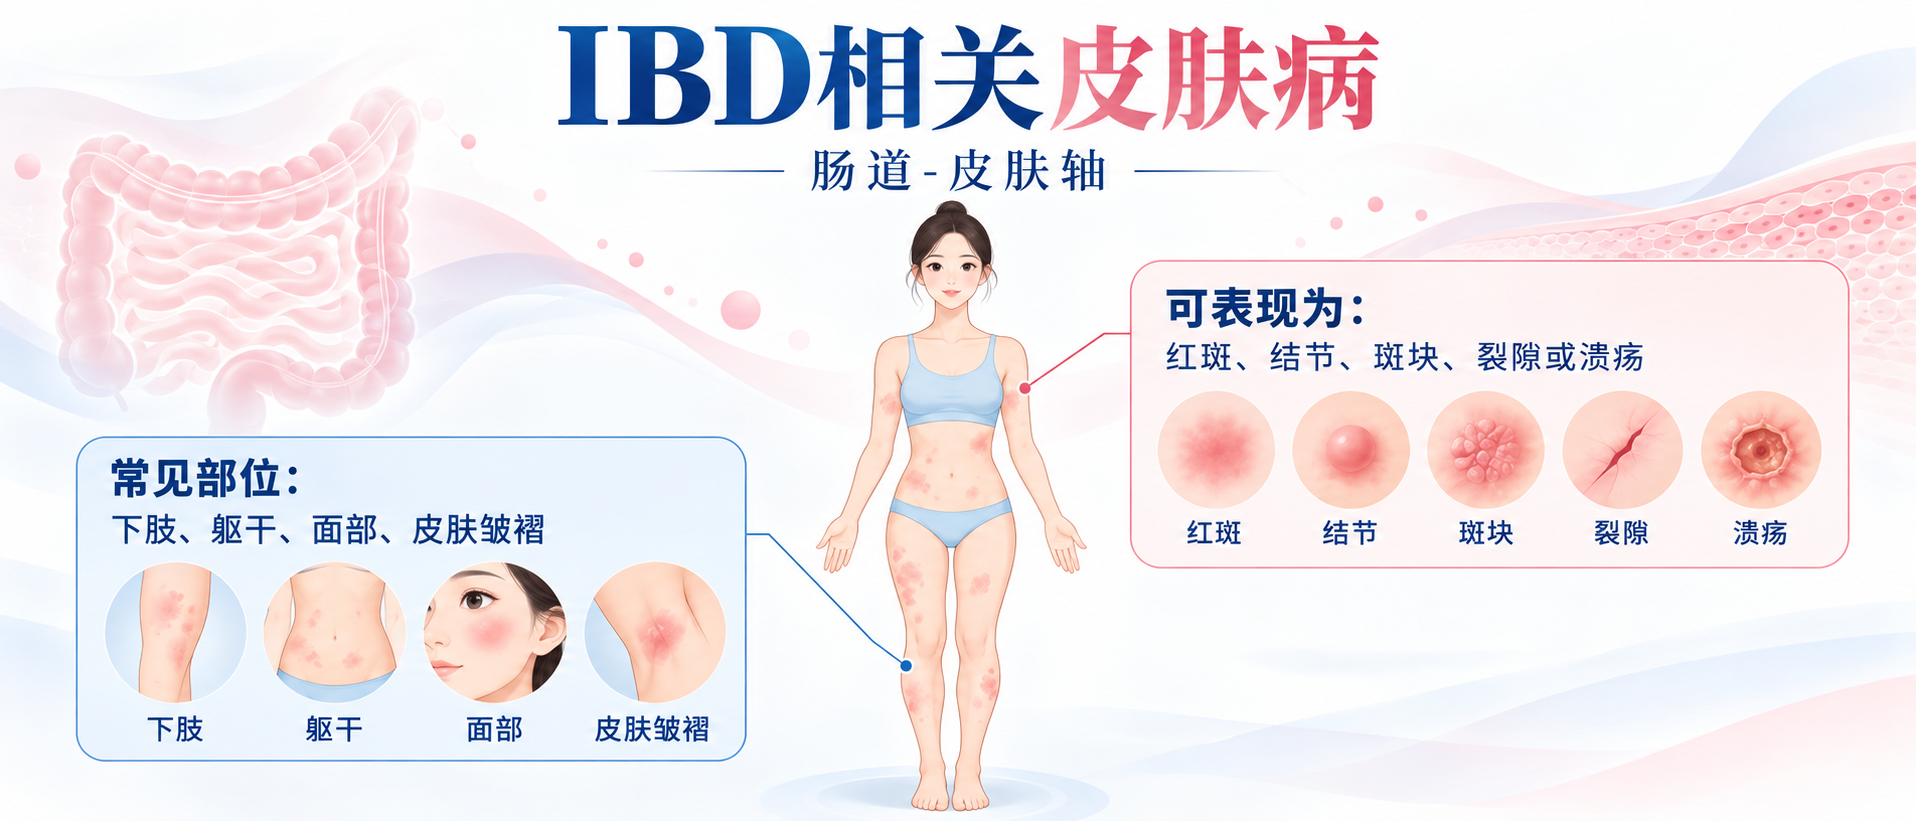
根据皮肤病变与IBD之间的关系,相关表现大致可以分为三类。
一类是疾病特异性皮肤表现,其病理特征与肠道疾病本身具有直接联系,代表性疾病为转移性克罗恩病。
第二类是反应性皮肤表现,主要涉及异常免疫炎症反应,包括结节性红斑、坏疽性脓皮病及Sweet综合征。
第三类是与IBD存在共同免疫机制的皮肤疾病,例如银屑病和化脓性汗腺炎。两者可能共享部分遗传易感因素和炎症通路,但并不意味着所有相关皮损均由IBD直接引起。
此外,部分皮肤表现与IBD治疗有关,例如抗TNF-α药物诱发的银屑病样皮疹。
这些疾病虽然都可能发生于IBD患者,但其临床特征、组织病理、与肠道活动度的关系,以及治疗策略存在明显差异。下面我们来介绍每一种相关皮肤病的表现。
结节性红斑:最常见的IBD相关皮肤表现之一
结节性红斑(erythema nodosum,EN)是IBD最具代表性的皮肤表现之一,约见于3%–10%的UC患者及4%–15%的克罗恩病患者。
小腿突然出现疼痛性红结节
结节性红斑通常急性起病,典型表现为双下肢,尤其是小腿胫前区域出现多个红色、隆起、疼痛明显的皮下结节。病变局部常有压痛及温度升高,部分患者还可伴有关节痛、发热等全身症状。
从病理学角度来看,结节性红斑属于脂膜炎的一种,主要累及皮下脂肪组织间隔,因此被归类为间隔性脂膜炎。早期病变可见中性粒细胞浸润,但通常不伴有血管炎。
与一些严重的溃疡性皮肤疾病不同,结节性红斑一般不会发生皮肤破溃,皮损消退后通常也不会留下永久性瘢痕。
结节性红斑活动往往与IBD肠道炎症活动平行
当IBD处于活动期时,结节性红斑可能出现或加重;随着肠道炎症得到控制,皮肤结节也常逐渐改善。因此,结节性红斑的出现有时可以为临床评估IBD活动状态提供线索。
并非IBD特有:还需要排除哪些疾病?
链球菌感染、结核、结节病、药物反应及其他自身免疫性疾病,同样可能导致类似皮损。
因此,对于疑似结节性红斑的患者,除观察皮损的形态、分布和压痛特点外,还需要结合病史及相关检查进行病因判断。常用的初步检查包括血常规、C反应蛋白等;如果怀疑存在结核或链球菌感染,则需要进一步进行针对性筛查。对于表现不典型的患者,可考虑皮肤活检。
如何治疗?控制肠道炎症是重要环节
对症处理可包括休息、抬高患肢及局部加压等措施。部分患者可能需要抗炎药物或其他系统治疗。
需要注意的是,非甾体抗炎药虽然能够缓解结节性红斑引起的疼痛,但可能加重IBD,因此使用时应谨慎评估。
对于与IBD活动密切相关的结节性红斑,随着基础疾病得到控制,皮损往往也能够逐渐改善。
坏疽性脓皮病:发生率较低,可能造成严重组织损伤
坏疽性脓皮病(pyoderma gangrenosum,PG)是另一种重要的IBD相关反应性皮肤表现,约发生于1%–2%的IBD患者。其特征为大型、疼痛的溃疡迅速形成,这些溃疡通常出现在腿部。一些研究表明,该疾病在女性中的发病率较高。
虽然坏疽性脓皮病的发生率低于结节性红斑,但其病变通常更加严重,可造成明显疼痛、皮肤缺损和瘢痕,对患者生活质量产生较大影响。
典型的临床表现:快速进展的疼痛性皮肤溃疡
病变早期可能表现为丘疹、脓疱或小范围皮肤破损,随后迅速扩大,形成边缘不规则、紫红色、潜行性的溃疡,周围常伴有红斑和硬结。
病变主要发生于下肢伸侧,但并不局限于腿部,也可累及腹壁,尤其是在腹部手术后愈合处的皮肤表面。
编辑
根据临床形态,坏疽性脓皮病还可分为不同类型。
一种是脓疱型,表现为疼痛的脓疱和环形溃疡;
一种是水疱型,会迅速形成水疱,最终导致溃疡和坏死;
一种是增生型,表现为边界清晰、较浅的溃疡,最终发展成外生性病变。
典型的或溃疡性坏疽性脓皮病表现为迅速形成的疼痛溃疡,边缘呈暗紫色,周围有硬结和红斑。
一个重要特点是创伤性反应
所谓创伤性反应(pathergy),是指皮肤受到轻微损伤后,出现异常强烈的炎症反应,并在损伤部位形成新的皮损。文献报道,约30%的坏疽性脓皮病病例可出现这一现象,即针刺、昆虫叮咬或手术切口等轻微损伤,也可能诱发新的溃疡,或使已有皮损进一步扩大。
注:超过一半的创伤性反应患者存在某种基础疾病,通常是炎症性肠病或关节炎。
这一特点对临床处理十分重要。对于疑似坏疽性脓皮病的患者,需要注意避免不必要的皮肤创伤,并在专业评估下开展伤口处理。
坏疽性脓皮病诊断是通过排除法来确定的
既基于临床表现,也基于组织学检查。除了一些非特异性的组织学特征外,没有其他特定的实验室指标可用于其诊断。
主要诊断标准包括:在排除其他导致皮肤溃疡的原因后,出现快速发展的、伴有疼痛的、坏死性皮肤溃疡,其边缘不规则、呈紫色且凹凸不平。
临床医生通常需要结合皮损形态、疾病进展速度、病史及病理结果,同时排除感染、血管性疾病和其他原因导致的皮肤溃疡。
目前,Delphi诊断标准、Su标准及PARACELSUS评分系统可用于辅助临床判断。
注:Delphi专家共识提出了诊断溃疡型坏疽性脓皮病的1项主要标准和8项次要标准,有助于临床医生减少误诊,并筛选适合纳入临床试验的患者。
在PARACELSUS评分系统中,皮肤活检仅被列为次要诊断标准。考虑到坏疽性脓皮病患者接受皮肤活检的比例存在差异,这一设置强调,相较于单纯依赖组织病理学结果,结合临床表现及病史进行综合判断,往往更有助于PG的诊断。
肠道炎症缓解,坏疽性脓皮病仍可能持续存在?
坏疽性脓皮病的治疗同样比结节性红斑复杂。除温和的局部伤口护理、感染监测和疼痛管理外,部分患者还需要接受全身性免疫抑制治疗。
糖皮质激素和环孢素是重要的系统治疗选择,对于部分难治性病例,也可能考虑抗TNF-α等生物制剂。
需要特别注意的是,坏疽性脓皮病的疾病活动不一定与肠道炎症同步。
部分患者即使IBD已经得到控制,坏疽性脓皮病仍可能持续存在或反复发作。因此,不能简单认为只要肠道症状缓解,坏疽性脓皮病就一定会随之好转。
这也是结节性红斑和坏疽性脓皮病在临床管理上的一个重要区别:
前者通常与肠道炎症活动密切相关;
后者可能具有相对独立的炎症过程,需要针对皮肤病变本身进行持续评估和治疗。
Sweet综合征:伴随全身炎症的急性皮肤表现
Sweet综合征(Sweet’s syndrome,SS),又称急性发热性中性粒细胞性皮病,是IBD相对少见的一种反应性皮肤表现。
突发疼痛性红斑,还可能伴随发热
其典型表现为突然出现的疼痛性红斑、斑块或结节,常分布于上肢、躯干、头颈部,并可能伴有发热、白细胞增多及炎症指标升高。
编辑
与结节性红斑主要累及皮下脂肪组织不同,Sweet综合征的组织病理学特点通常是真皮内出现明显的中性粒细胞浸润,而无血管炎证据。
如何确诊?临床表现与组织病理是关键
经典型Sweet综合征的诊断需要结合临床表现与组织病理结果。突发疼痛性红斑或结节,以及真皮内中性粒细胞浸润是主要诊断依据;发热、白细胞升高、伴随炎症性疾病及糖皮质激素治疗反应等,可提供进一步支持。
Sweet综合征由什么诱发?
IBD相关Sweet综合征既可能与肠道疾病的免疫异常有关,也可能由药物诱发。
例如,硫唑嘌呤(azathioprine,AZA)虽然是IBD治疗中使用的免疫调节药物,但也被报道与药物诱发的Sweet综合征有关。
部分TNF-α抑制剂同样存在既可能治疗、也可能诱发Sweet综合征的报道,提示相关免疫通路具有一定复杂性。
治疗如何选择?识别诱因与控制炎症
对于药物诱发的病例,识别可能的致病药物十分重要。治疗通常需要考虑糖皮质激素,其他选择包括秋水仙碱、碘化钾及部分免疫调节药物。对于难治性或激素依赖性病例,IL-1或TNF-α相关靶向治疗也受到关注。
转移性克罗恩病:发 在肠道之外的肉芽肿性炎症
转移性克罗恩病(metastatic Crohn’s disease,MCD)是一种罕见的克罗恩病特异性皮肤表现。
这里的“转移性”并非肿瘤转移,而是指在与胃肠道病变不连续的皮肤部位,出现与肠道克罗恩病具有相似组织病理特征的肉芽肿性炎症。
其组织学特点为非干酪样肉芽肿形成。
皮损形态多样,会阴部“刀割样裂隙”
MCD的临床表现具有较大差异,可以表现为红斑、结节、斑块、深部裂隙或溃疡,病变可累及下肢、躯干、面部及皮肤皱褶区域。
编辑
其中,外生殖器及会阴部受累是较具特征性的表现之一,尤其在成年患者中值得关注。病变可能表现为外阴、阴囊或会阴部水肿、深部溃疡、肥厚性改变以及具有特征性的刀割样裂隙。
容易漏诊?关键在了解病史与皮肤活检
由于这些皮损形态多样,且部分表现与感染性或其他炎症性皮肤疾病相似,MCD常面临诊断延迟的问题。
在组织病理学上,MCD也需要与结节病、皮肤结核及异物肉芽肿反应等疾病进行鉴别。
因此,诊断通常需要结合已知的克罗恩病病史、皮损分布及皮肤活检结果,必要时进一步排除其他肉芽肿性疾病。
应先评估药物治疗,再考虑手术
治疗方面,MCD可能需要局部或全身性糖皮质激素、免疫抑制剂、抗生素及生物制剂等综合治疗。
甲硝唑是文献中较常使用的抗生素之一,英夫利西单抗等抗TNF-α药物也被用于部分病例的诱导及维持治疗。
在免疫抑制剂方面,伊氟利松被一致认为是对 MCD 的胃肠道症状进行诱导治疗和维持治疗的有效药物。治疗选项包括类固醇(局部使用或全身使用)、甲硝唑、磺胺氯吡嗪、甲氨蝶呤、高压氧治疗、AZA以及抗TNF-α抗体等。
对于严重会阴部MCD,研究强调应在考虑手术干预前评估抗TNF-α治疗的可能性。对于药物治疗无效的严重病变,才可能进一步考虑手术治疗。
注:对于那些对药物治疗无反应的严重皮肤溃疡,可以考虑采用手术切除并结合口服硫酸锌的治疗方法。
牛皮癣:共 共享炎症通路,但治疗反应并不完全相同
银屑病(牛皮癣)是一种慢性免疫介导性炎症性皮肤病,主要表现为边界清楚的红色斑块,表面覆盖银白色鳞屑,可伴有不同程度的瘙痒。
斑块型银屑病是最常见的临床类型,通常累及头皮、肘部、膝部及臀间沟等部位。
编辑
编辑
除斑块型外,银屑病还包括点滴型、脓疱型和红皮病型等不同类型。部分患者可能出现掌跖受累,表现为角化过度、厚鳞屑或脓疱性病变。
临床上,银屑病通常依靠典型皮损特征进行诊断,必要时结合组织病理学检查。银屑病面积与严重程度指数(PASI)则常用于疾病严重程度和治疗效果评估。
银屑病与IBD,共享一条炎症通路
从遗传学和免疫学角度看,两种疾病均涉及免疫调节异常,并存在部分共同的遗传易感位点及炎症通路,尤其与IL-23/Th17轴有关。
IL-23参与维持Th17细胞相关反应,而Th17细胞产生的IL-17等细胞因子可促进局部炎症及免疫细胞募集。
抗炎药物也可能诱发银屑病?
不过,两种疾病共享部分炎症通路,并不意味着针对同一靶点的药物对肠道和皮肤具有完全相同的作用。
例如,抗TNF-α药物能够治疗部分IBD及银屑病患者,但在某些接受抗TNF治疗的IBD患者中,反而可能出现新发或加重的银屑病样皮损。
这种反常性皮肤反应,是IBD治疗中值得关注的问题,后文将进一步讨论。
化脓性汗腺炎:反复出现的深部结节、脓肿和窦道
化脓性汗腺炎(hidradenitis suppurativa,HS)是一种慢性、复发性炎症性皮肤疾病。
化脓性汗腺炎的典型表现是皮肤皱褶区域反复出现疼痛性深部炎性结节和脓肿,常见部位包括腋窝、腹股沟、会阴、肛周、臀部及乳房下方。
编辑
随着疾病反复发作,部分患者可能形成慢性窦道、瘢痕及局部组织结构改变。
与短期发生、可逐渐消退的普通炎症性皮损不同,化脓性汗腺炎往往具有长期反复发作的特点,慢性疼痛、渗出、瘢痕和活动受限可能显著影响患者生活质量。
临床诊断主要依靠典型皮损、解剖部位及反复发作的病程,目前缺乏单一的特异性实验室诊断指标。
化脓性汗腺炎与IBD存在关联
化脓性汗腺炎与IBD之间存在一定的流行病学关联,部分研究尤其关注化脓性汗腺炎与克罗恩病共存的情况。
在潜在机制上,两种疾病可能涉及共同的遗传易感因素、细胞因子调节异常、先天免疫反应及微生物群变化。
两种疾病同时存在,治疗该如何兼顾?
在治疗方面,化脓性汗腺炎可根据病情严重程度采用局部克林霉素、系统性抗菌药物及其他抗炎治疗。对于部分中重度患者,可考虑阿达木单抗等生物制剂。
当化脓性汗腺炎与IBD同时存在时,治疗方案还需要综合考虑两种疾病的活动情况以及不同药物的适应证与风险。
编辑
Al-Rubaye K,et al., Transl Gastroenterol Hepatol. 2026 Sep 19
上述多种皮肤疾病在临床表现上差异明显,但在发病机制方面却存在一些共同特征。
近年来,研究者提出了肠道–皮肤轴的概念,用于解释肠道与皮肤之间可能通过免疫系统、微生物群及其代谢产物形成的相互联系。
这一机制强调遗传易感性、肠道屏障损伤以及异常免疫反应,可能共同影响肠道和皮肤两个组织系统。
IBD与皮肤表现共同发生的潜在影响因素总览图
编辑
doi: 10.21037/tgh-2025-142
遗传易感性与肠道屏障损伤
遗传因素在IBD发生发展中发挥重要作用。
NOD2与ATG16L1:两个值得关注的IBD易感基因
NOD2是克罗恩病的重要易感基因,其编码蛋白参与细菌组分识别及先天免疫调节。
ATG16L1则与自噬过程及细胞稳态维持有关。
研究提示,NOD2和ATG16L1相关异常可能损害潘氏细胞功能,影响肠道屏障完整性,使肠道微生物成分更容易与宿主免疫系统接触。
肠道屏障受损,如何进一步激活炎症反应?
正常情况下,肠道黏液层、上皮紧密连接以及黏膜免疫系统共同维持肠道屏障功能。
在IBD中,这些屏障结构和功能可能发生改变,导致肠道通透性增加,从而促进微生物相关成分与免疫系统之间的相互作用,并进一步激活炎症反应。
肠道与皮肤的共同炎症易感性
IBD与部分免疫介导性皮肤疾病共享遗传风险位点,包括与IL-23相关的免疫调节基因。共同遗传背景可能使部分患者更容易同时发生肠道和皮肤炎症,但遗传因素本身并不足以解释所有皮肤表现。
Th1/Th17及炎症细胞因子:共同的免疫通路
在IBD中,肠道抗原提呈细胞受到微生物及炎症信号刺激后,可分泌TNF-α、IL-1、IL-6、IL-12和IL-23等细胞因子。
炎症信号如何持续放大?
这些炎症信号参与初始CD4⁺ T细胞活化及分化,促进Th1和Th17等效应T细胞反应。
Th1相关炎症反应涉及IFN-γ等细胞因子,而Th17细胞可产生IL-17、IL-22等炎症介质。IL-23则参与维持和增强Th17相关免疫反应。
当这些炎症通路持续激活时,可促进免疫细胞募集、局部组织损伤及炎症放大。
编辑
Al-Rubaye K,et al., Transl Gastroenterol Hepatol. 2026 Sep 19
促炎反应与免疫调节失衡
与此同时,调节性T细胞(Treg)及IL-10等免疫调节机制参与抑制过度炎症。
在坏疽性脓皮病等皮肤疾病中,研究观察到Th17相关炎症信号增强及Treg细胞数量下降,提示促炎反应和免疫调节之间的平衡可能受到破坏。因此,肠道与皮肤可能并不是发生了完全独立的两种炎症,而是在不同组织中表现出部分共同的免疫调控异常。
不过,不同组织对炎症细胞因子的依赖程度并不完全相同,这也是某些免疫靶向药物对肠道和皮肤具有不同治疗效果的原因之一。
免疫细胞迁移与中性粒细胞活化
除了共同的炎症通路,免疫细胞在不同组织间的迁移也是连接肠道与皮肤的重要潜在机制。
T细胞如何找到炎症部位?
正常情况下,T细胞的组织归巢受到黏附分子和趋化因子的调控。例如,MAdCAM-1/α4β7和CCL25/CCR9等分子参与淋巴细胞向肠道迁移。
在炎症状态下,趋化因子的表达可能发生改变,从而影响免疫细胞在不同组织间的分布。
CCL20/CCR6等趋化信号:连接肠道与皮肤的潜在线索
研究发现,肠上皮细胞和皮肤角质形成细胞均能够产生CCL20,而CCL20可募集表达CCR6的Th17细胞。
CCL27/CCL28与CCR10,以及CXCL9、CXCL10、CXCL11与CXCR3等趋化因子–受体系统,也可能参与肠道和皮肤炎症组织中的淋巴细胞募集。
这些发现为肠道炎症相关免疫细胞可能影响皮肤提供了机制解释。
中性粒细胞异常活化:NETs如何进一步放大炎症?
除淋巴细胞外,中性粒细胞的异常活化也具有重要作用。
IBD患者的部分循环中性粒细胞可能处于预激活状态,释放TNF-α、IL-1β等炎症介质,并通过中性粒细胞胞外诱捕网(NETs)及相关信号促进炎症放大。
编辑
中性粒细胞还可能影响巨噬细胞功能,促进其向促炎性M1表型极化,使局部炎症持续存在。
这种免疫异常在坏疽性脓皮病和Sweet综合征等中性粒细胞性皮病中尤其值得关注。
肠道菌群与微生物代谢产物
肠道菌群失调被认为是连接IBD与皮肤炎症的潜在因素之一。IBD患者的菌群异常不仅涉及保护性共生菌减少和条件致病菌增殖,还与肠道黏液层受损、上皮紧密连接异常及肠道通透性增加有关。这些变化可能使更多微生物相关成分接触免疫系统,进一步参与全身炎症反应。
部分研究发现,与健康人群相比,IBD患者粪便中的产短链脂肪酸细菌减少。研究人员指出,肠道微生物产生的短链脂肪酸能够支持具有抗炎作用的调节性T细胞(Treg)生成。
银屑病患者的皮损区域可出现菌群丰富度及多样性下降,Shannon多样性指数低于非皮损区域和对照样本。研究提到,白色念珠菌(Candida albicans)、马拉色菌(Malassezia)和金黄色葡萄球菌的异常增多可能与银屑病症状加重有关。
注:肠道菌群参与IBD皮肤表现的具体因果机制,仍有待进一步研究。
肠道微生物失调和饮食可能会
在银屑病中诱导轻度和慢性炎症
编辑
Liu S, et al., Cell Communication and Signaling, 2024
肠道通透性增加导致的“肠漏”可以诱导脂多糖(LPS)、脂蛋白(LTA)、外毒素(ET)和肽聚糖(PG)等强效炎症介质的释放,以及肠道细菌DNA进入血液。
柠檬酸杆菌感染可以刺激ILC3s产生IL-22和IL-17A,从而有助于黏膜免疫。ILC3s的功能也受到微生物代谢产物短链脂肪酸(醋酸、丁酸和丙酸)的影响。
乙酸和丙酸与结肠ILC3s上的FFAR2受体相互作用,激活AKT或ERK信号通路,并通过STAT3轴释放IL-22;
而丁酸则降低ILC3s的数量,同时,丁酸增强Treg细胞的分化,叶酸有助于维持Treg细胞,中长链脂肪酸支持Th1和Th17细胞的分化。
高盐饮食导致渗透压改变激活P38/MAPK通路,进而上调下游靶点NFAT5和SGK1,这反过来驱动转录因子RORγt、IL-23R、IL-17A和IL-17F的表达,导致Th17分化。上调的SGK1通过磷酸化Foxo1促进IL-23R的表达和稳定Th17分化。
IBD的治疗不仅涉及肠道炎症控制,也需要考虑相关皮肤疾病及治疗药物的不良反应。
随着生物制剂在IBD治疗中的广泛应用,一种值得关注的现象逐渐被认识:某些原本用于抑制炎症的药物,反而可能诱发新的炎症性皮肤表现。
抗TNF-α治疗与反常性银屑病
抗TNF-α药物:同时作用于肠道与皮肤炎症
TNF-α是参与IBD和部分皮肤炎症性疾病的重要促炎细胞因子。
英夫利西单抗、阿达木单抗等抗TNF-α药物能够用于IBD治疗,同时也可改善部分银屑病及其他免疫介导性皮肤病。
然而,一些患者在接受抗TNF-α治疗后,可能出现新发银屑病或原有银屑病加重,这种现象被称为反常性银屑病(paradoxical psoriasis)。
研究报道,相关皮损约发生于2%–5%的治疗患者,在IBD患者中可能更加常见。
TNF-α与IFN-α:反常性炎症背后的免疫调节机制
其潜在机制可能与TNF-α抑制后,浆细胞样树突状细胞(pDCs)产生IFN-α的调控发生改变有关,从而诱发银屑病样炎症反应。
这一现象说明,阻断某一炎症通路并不一定能够同时抑制所有组织中的炎症。部分情况下,免疫网络中的调节平衡发生改变,反而可能促进其他类型的炎症。
IL-17抑制剂与IBD发生或加重风险
另一个值得关注的问题是IL-17抑制剂。
IL-17抑制剂在银屑病、银屑病关节炎和强直性脊柱炎治疗中具有明确疗效,但也有新发或加重IBD的相关报道。
这一现象进一步说明,尽管肠道与皮肤共享部分炎症通路,但不同组织对同一种免疫靶向干预的反应可能存在差异。
因此,对于同时患有IBD与皮肤疾病的患者,选择生物制剂时不能仅依据其对单一疾病的治疗作用,而应综合评估肠道和皮肤两方面的获益与风险。
如何区分药物不良反应与IBD相关皮肤表现?
IBD患者在治疗过程中出现新发皮损,并不一定意味着肠道炎症加重。
可能的原因包括:IBD相关肠外表现、独立存在的皮肤疾病、药物诱发的反常性炎症,以及感染性皮肤病变。
尤其对于使用抗TNF-α药物或其他免疫抑制剂的患者,细菌、真菌、病毒及机会性感染风险也需要受到关注。
由于这些皮损在临床形态上可能存在重叠,诊断需要结合药物使用时间、皮损特征、肠道疾病活动状态及必要的检查。
明确病因后,才能决定是继续观察、增加针对皮肤病变的治疗,还是重新评估当前IBD用药方案。
肠道与皮肤需要共同管理
2024年欧洲克罗恩病和结肠炎组织(ECCO)发布的IBD肠外表现指南明确指出,结节性红斑通常与活动性肠道炎症密切相关。当皮损与IBD活动有关时,治疗的首要目标是控制基础肠道疾病,随着肠道炎症缓解,皮损通常也会逐渐消退。
坏疽性脓皮病的活动可能与肠道炎症不同步,即使肠道症状已经缓解,皮肤溃疡仍可能持续进展。ECCO指南因此建议,对于严重坏疽性脓皮病,应尽早考虑具有系统性抗炎作用的治疗,尤其是英夫利西单抗等抗TNF-α药物,同时配合适当的伤口护理和疼痛管理。
Sweet综合征需要关注是否存在药物诱发因素;化脓性汗腺炎则需要长期管理复发性炎症、窦道和瘢痕。对于接受抗TNF-α治疗后出现银屑病样皮损的患者,还需要判断其是否属于反常性皮肤反应。
因此,IBD相关皮肤病的管理应建立在尽量准确识别皮损类型的基础上,同时评估肠道疾病活动和皮肤病变的严重程度。
在临床实践中,可结合症状、C反应蛋白(CRP)、粪便钙卫蛋白以及必要的内镜检查、肠道菌群检测评估肠道炎症。
编辑
<来源:谷禾健康肠道菌群检测数据库>
皮肤方面则根据疾病类型观察皮损面积、溃疡愈合情况、结节或脓肿数量及复发频率。
注:对于病情复杂的患者,胃肠病科、皮肤科及临床营养团队的共同评估尤其重要。
从肠道入手:饮食和营养干预
除了常规抗炎和免疫调节治疗,肠道微生物群及其代谢功能也为IBD相关皮肤病的干预提供了新的研究方向。
前文提到,肠道菌群失衡可能通过影响屏障功能、微生物代谢产物及免疫细胞反应,参与系统性炎症的形成。从这一角度看,改善肠道微环境,有可能通过降低炎症负荷,间接影响皮肤炎症。
地中海饮食:可作为长期健康饮食的基础
2024年美国胃肠病学会(AGA)临床实践建议指出,在没有禁忌证的情况下,IBD患者可以采用以蔬菜、水果、全谷物、橄榄油、鱼类等为基础的地中海式饮食,并适当减少超加工食品、添加糖和过多盐分的摄入。
注:对于存在症状性肠道狭窄、营养不良或特殊食物耐受问题的患者,膳食纤维的种类、质地及摄入量需要个体化调整,不宜机械地增加高纤维食物。
对于IBD合并皮肤病的患者,合理的做法仍是根据肠道疾病类型、活动程度和肠道菌群检测报告中的营养状态选择有证据支持的饮食或营养治疗,并将皮损变化作为值得关注的临床观察指标。
如果说饮食和营养干预主要是通过改善肠道环境及基础疾病状态发挥作用,那么益生菌、营养补剂等策略,则试图更直接地影响肠道微生物群及其功能。
益生菌:银屑病研究已有积极信号
一项随机、双盲、安慰剂对照试验,纳入90名斑块型银屑病患者,研究由三种特定菌株组成的益生菌组合,包括:
Bifidobacterium longum CECT 7347;
Bifidobacterium lactis CECT 8145;
Lactobacillus rhamnosus CECT 8361。
经过12周干预,益生菌组达到银屑病面积与严重程度指数改善75%(PASI 75)的患者比例为66.7%,安慰剂组为41.9%。研究还观察到益生菌干预与肠道菌群组成改变及较低的后续复发风险有关。
回顾性分析显示,83.7% 的银屑病患者在接受唾液链球菌K-12治疗 24 周后,PASI 评分改善了 100%,并且随着治疗持续时间的延长,疗效持续改善。
一项随机对照试验发现,持续口服婴儿双歧杆菌35624(B.fantis)可显著改善银屑病的进展,并降低C反应蛋白和肿瘤坏死因子TNF-α的表达,显示出免疫调节作用。人体微生物群的作用不仅限于粘膜免疫系统,还延伸到全身免疫系统。
营养补充剂与植物活性成分:肠–皮轴干预的新方向
除饮食调整和益生菌外,Omega-3脂肪酸、维生素D及部分植物活性成分也受到关注,其潜在作用涉及炎症调节、肠道屏障功能和肠道微生物群。
Omega-3脂肪酸与维生素D: 鱼油具有一定抗炎潜力,但银屑病临床试验结果并不一致。大型VITAL试验发现,补充维生素D(2000 IU/天)可使总体自身免疫性疾病发病风险降低约22%。
姜黄素: 是目前较值得关注的植物活性成分。研究提示,姜黄素可能改变肠道菌群组成及微生物代谢功能。部分银屑病临床试验观察到PASI评分改善和炎症指标下降;UC临床研究也发现,其作为常规治疗的辅助干预具有一定潜力。
白藜芦醇: 动物研究发现,白藜芦醇能够改善肠道屏障功能,并改变拟杆菌属、Alistipes、Parabacteroides等菌群的相对丰度;另有研究观察到Blautia、Dorea等菌群增加。
槲皮素: 在咪喹莫特诱导的银屑病样皮炎小鼠模型中,槲皮素可减轻皮损,并降低TNF-α、IL-6及IL-17等炎症信号,提示其可能通过调节IL-23/Th17通路发挥作用,但仍缺乏充分的人体临床证据。
锌:对于化脓性汗腺炎,一项22人的初步研究发现,口服锌后8人完全缓解、14人部分缓解。2025年欧洲HS指南也提出,可考虑将葡萄糖酸锌用于轻中度化脓性汗腺炎的二线维持治疗,但长期高剂量补锌存在铜缺乏等风险。
肌醇+叶酸+镁:一项纳入20名伴糖代谢异常的化脓性汗腺炎患者的小规模研究发现,在常规抗生素治疗基础上补充肌醇、叶酸和脂质体镁,6个月后皮损严重程度评分(Sartorius评分)由38.3降至27.3,同时胰岛素抵抗指标也有所改善。
海藻硫酸化多糖SXRG84:一项双盲、安慰剂对照交叉试验,44名患有炎症性皮肤疾病的受试者每日口服2 g SXRG84、持续6周后,研究观察到IFN-γ、IL-1β、TNF-α等炎症指标的变化,约23%的参与者报告皮肤状况有所改善。
此外,乳清蛋白提取物XP-828L,以及辅酶Q10、维生素E和硒的联合补充,也在银屑病人体研究中显示出一定辅助治疗潜力。
IBD相关皮肤病变不仅是肠道炎症的肠外表现,也反映了肠道屏障、免疫系统与皮肤之间复杂的相互作用。不同皮肤疾病的发生机制和临床病程存在差异,因此需要兼顾肠道炎症控制与皮肤病变的针对性治疗。
随着肠–皮轴研究的深入,从肠道微生态入手干预皮肤炎症正成为值得关注的新方向。未来,结合肠道菌群检测、免疫指标及临床表现开展更精准的研究,或将为IBD相关皮肤疾病的个体化管理提供新的思路。
注:本文仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
主要参考文献:
Al-Rubaye K, Alrubaiy L. The overlooked surface: cutaneous manifestations of inflammatory bowel disease. Transl Gastroenterol Hepatol. 2026 Sep 19;11:113.
Miulescu RG, Costescu M, Marin RC, Mușetescu A, Muntean C, Roşca I, Adam II, Ilici A, Coman OA. The Gut-Skin Axis in Pediatric Atopic Dermatitis: Nutritional Modulation, Microbiome Interactions, and Emerging Precision Approaches. Nutrients. 2026 Sep 23;18(19):3138.
Zhao N, Cao W, Liu W, Wu L, Huang R. Gut Microbiota in Psoriasis: Evidence for Dysbiosis, Pathological Mechanisms, Causality, and Therapeutic Implications. Clin Cosmet Investig Dermatol. 2026 Oct 1;19:630661.
Demirbağ Gül B, Şentürk N. Elevated fecal calprotectin levels in psoriasis: association with disease severity. Cutan Ocul Toxicol. 2026 Sep 28:1-8.
He R, Zhao S, Cui M, Chen Y, Ma J, Li J, Wang X. Cutaneous manifestations of inflammatory bowel disease: basic characteristics, therapy, and potential pathophysiological associations. Front Immunol. 2023 Oct 26;14:1234535.
谷禾健康
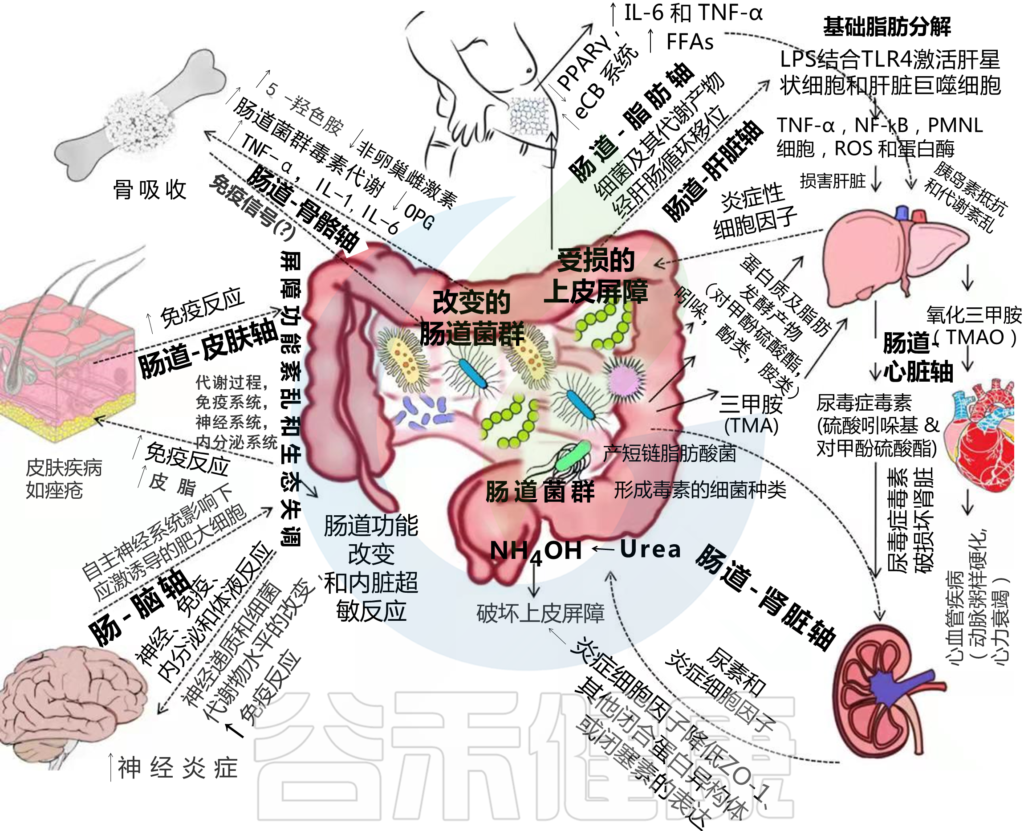
肠道菌群和宿主免疫代谢系统之间的复杂相互作用会影响与其他器官相关的身体功能,它们之间形成“轴”。
这种串扰通过宿主和微生物及其代谢物之间的直接或间接相互作用发生。宿主-微生物免疫代谢轴是宿主细胞途径和各种微生物群之间的多向通信系统。在这个轴内,不同的微生物通过产生胆汁酸、胆碱、短链脂肪酸、神经递质、小分子、有毒物,炎症因子等来调节生理代谢过程,从而对健康和疾病发生产生重要的影响。
图1 在肠道、相关微生物群和各种器官之间的双向或多向通信连接(轴)
Ahlawat S,et al.,Lett Appl Microbiol. 2021
肠道菌群在个体之间或在同一个人的一生中是不同的,并且受到各种因素的影响,包括饮食、年龄、生活方式、药物、疾病状态等。受这些因素影响的动态的肠道菌群成分可能会通过改变多样性或组成来影响健康或疾病风险。
因此,胃肠道和相关微生物群的一个复杂综合的对话机制在越来越多的研究中被证实,肠道以及肠道菌群与各个器官的对话交流机制,即“肠道-器官轴”,在维持各个器官的健康方面变得越来越重要。
本文主要讨论了肠道和人体重要器官之间的双向关系,以及在各类疾病中肠道菌群发挥的作用。
本文主要介绍的各类肠轴如下:
01 肠-大脑轴
02 肠-肾脏轴
03 肠-肝脏轴
04 肠-骨骼轴
05 肠-皮肤轴
06 肠-脂肪轴
07 肠-心脏轴
“肠道作为“第二大脑”影响情绪和行为
大脑和肠道的双向沟通,构成了“肠-脑轴”的基础。肠-脑轴相互作用的证据来自各种研究,涉及无菌动物模型、抗生素、益生菌、中枢神经系统疾病和功能性胃肠道疾病的生态失调。
通过建立肠-脑轴,肠道菌群可以影响大脑,如行为、食欲调节、肠道糖异生和5-羟色胺代谢。
肠道菌群的改变与焦虑、多发性硬化、自闭症谱系障碍、帕金森病等多种神经系统疾病有关。
在了解肠道菌群是如何影响肠脑轴之前,我们先了解一下肠-脑轴是怎么回事。
肠道-大脑轴将大脑的认知和情感中心与外周肠道功能(即免疫激活、肠道反射、肠道通透性和肠道内分泌信号)联系起来。
肠-脑轴涉及:
中枢神经系统(CNS),包括大脑和脊髓;
自主神经系统(ANS)及其交感和副交感肢体;
肠神经系统(ENS);
下丘脑-垂体-肾上腺轴(HPA)
自主神经系统驱动从管腔到中枢神经系统的传入信号,通过脊髓、肠道和迷走神经通路传输,以及从中枢神经系统到肠壁的传出信号。
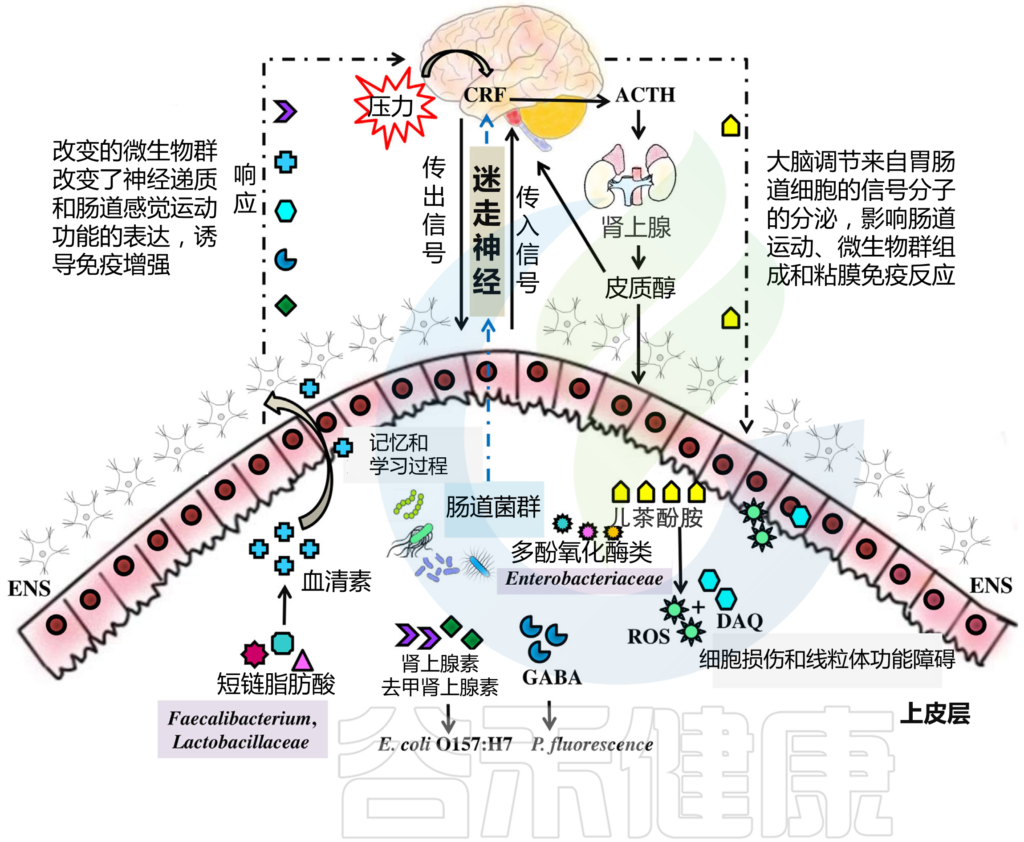
HPA轴涉及记忆和情绪反应,协调生物体对压力源的适应性反应。促炎细胞因子增加的环境应激通过下丘脑分泌促肾上腺皮质激素释放因子(CRF)触发该系统。CRF刺激垂体分泌促肾上腺皮质激素(ACTH),进而导致肾上腺分泌皮质醇,影响包括大脑在内的各种器官(下图)。
图2 “肠-脑轴”(GBA)结构示意图
Ahlawat S,et al.,Lett Appl Microbiol. 2021
因此,不同的通讯线路一起允许大脑控制肠道效应细胞的活动,这些细胞也受肠道菌群的影响。
关于肠脑轴,在我们之前的文章中也有详细介绍:深度解读 | 肠道菌群和中枢神经系统的关系
肠道菌群通过代谢和神经内分泌途径与肠道细胞和肠神经系统以及中枢神经系统进行沟通。
肠-脑轴的破坏控制着肠道功能的变化,如分泌和运动,导致内脏过敏,从而导致肠内分泌和免疫系统的细胞变化。
如果没有微生物定植会发生什么?
改变神经递质的表达(包括5-羟色胺、褪黑素、乙酰胆碱、GABA和组胺)和肠道感觉运动功能,如减少肠道运输、迁移性运动复合体循环复发、远端繁殖、延迟胃排空、扩大盲肠大小…
可能还有各种想象不到的后果,总之,肠道菌群在调节肠道和大脑功能方面起着至关重要的作用。
以细菌物种特异性的方式对动物进行定植可以恢复所有这些异常。
微生物群通过在肠腔中产生局部神经递质和儿茶酚胺的生物活性形式来影响肠神经系统活性。短链脂肪酸等细菌代谢物通过刺激交感神经系统、粘膜5-羟色胺释放、记忆和学习过程影响肠神经系统。
肠神经系统是什么?
肠神经系统主要由肠胶质细胞(EGCs)组成,类似于中枢神经系统中的星形胶质细胞。肠上皮细胞分布于肠壁,包括粘膜固有层。
肠神经系统有什么功能?
——肠神经系统自主调节胃肠道的生理和功能
肠神经系统可以自主调节胃肠道的生理和功能,并通过迷走神经通路与中枢神经系统进行双向沟通,从而形成“肠-脑轴”。
随着肠神经胶质网络的发展,肠道菌群在肠神经系统的调节中起着关键作用。肠神经胶质网络通过钙依赖性信号传导在调节胃肠功能方面发挥作用(如血流、肠道运动、免疫炎症反应和外分泌/内分泌)。
所以说,如果肠神经胶质细胞出了问题,就会导致胃肠道疾病,如炎症性肠病、运动障碍、PD等神经退行性疾病和感染引起的肠道炎症。
通过Toll样受体(TLR)发出的LPS信号在肠道菌群和肠神经系统发育之间起着中介作用。
——肠神经系统是肠内神经肽合成的关键来源
通过信号传递到远端器官,如大脑,产生肠外作用,而远端器官有迷走神经上的神经肽受体。
这些神经肽可以通过影响肠道菌群成分来调节肠道内稳态。它们水平的改变导致各种肠道失调和肠道炎症相关的神经精神障碍。例如,自闭症和重度抑郁症分别与降钙素基因相关肽(CGRP)、神经肽Y(NPY)和P物质(SP)(即神经传递介质)的循环水平改变有关。
微生物群调节血清素能系统,因为在无菌动物的边缘系统中发现血清素和相关代谢物水平的改变。
此外,肠道菌群具有多种氧化还原酶,可以调节神经递质的水平。例如,漆酶(一种多铜氧化酶或MCO)调节肠道中合成的血清素的数量,参与其代谢,在肠-脑轴中起重要作用。漆酶可将儿茶酚胺氧化为活性氧(ROS)和多巴胺奎宁(DAQ)。
研究发现,发现生成的 ROS 受损细胞和 DAQ, 与 帕金森患者的线粒体功能障碍和痴呆有关。微生物群通过迷走神经与大脑沟通,迷走神经将信息从管腔传输到中枢神经系统(图2)。
肠道细菌具有神经递质的表面受体,使肠道和中枢神经系统之间的联系更加有效。
例如,Pseudomonas fluorescence 具有GABA受体,而肾上腺素和去甲肾上腺素受体存在于大肠杆菌O157:H7上(图2)
肠道菌群调节肠道屏障和传入感觉神经,增强其兴奋性,从而调节肠道运动和疼痛感知。
肠道菌群通过激素调节饱腹感
肠道菌群也可能通过从肠内分泌细胞释放各种生物活性肽与肠-脑轴相互作用。例如,甘丙肽触发HPA轴的活动;因此,释放CRF和ACTH可增强肾上腺皮质的糖皮质激素释放,或直接刺激肾上腺髓质的去甲肾上腺素和肾上腺皮质细胞的皮质醇分泌。
几种外围使食欲减退的激素,如肽YY(PYY)、胰高血糖素样肽-1(GLP-1)、胰岛素、瘦素和阿片黑皮素原,以及含有可卡因和安非他明调节转录物的神经元,可诱导饱足感。然而,含有NPY和刺鼠相关肽(AGRP)的神经元的ghrelin(胃饥饿素)会增加饥饿感。
肠道菌群影响粘膜免疫激活
这可能部分由蛋白酶介导。蛋白酶是粘膜和肠神经损伤的终末期效应物,在几种肠道免疫介导的疾病中上调。
大脑调节来自免疫细胞、神经元和胃肠道嗜铬细胞的信号分子的分泌,这可能会影响微生物群的组成。
肠-脑轴的任何失调都会通过扰乱正常粘膜栖息地,影响肠道菌群。胃肠道转运的变化对营养物质输送到肠道微生物群有着深远的影响。
由于自主神经系统影响下应激诱导的肥大细胞导致肠道通透性增强,因此微生物群组成有所不同。这导致类胰蛋白酶和组胺失衡。微生物群的改变也是由于胃肠道Paneth细胞释放抗微生物肽,如α-防御素。
总之,肠道菌群对中枢神经系统的发育和功能有重大影响。同样,中枢神经系统调节胃肠道的生理,最终调节肠道环境。
Ahlawat S,et al.,Lett Appl Microbiol. 2021
许多神经系统疾病包括多发性硬化、帕金森病、阿尔茨海默病、癫痫症、中风与脑损伤等在这两篇文章中有详细介绍:
肠道微生物组在人类神经系统疾病中的作用
最新研究速递 | 柳叶刀:肠道微生物群在神经系统疾病中的作用
“调节体内废物的水平
肠道和肾脏也具有双向协同关系。
在一个方向上,尿毒症毒素如三甲胺-N-氧化物(TMAO)、对甲酚硫酸盐和吲哚硫酸盐从微生物代谢中产生;
而在另一个方向上,尿毒症会破坏肠道菌群组成和代谢。
这种双向交流之间的任何干扰都会导致各种严重并发症,如慢性肾病(CKD)、终末期肾病(ESRD)和脓毒性急性肾损伤(AKI)。
膳食纤维:通过菌群发酵成短链脂肪酸,修复肾上皮细胞
膳食纤维是菌群的碳水化合物来源。结肠微生物群的组成受到饮食及其在小肠中的同化作用的显著影响。膳食纤维逃避小肠的消化过程,成为结肠菌群碳水化合物的主要来源。
膳食纤维被结肠微生物群发酵成短链脂肪酸。短链脂肪酸在保持肠道上皮完整性和能量稳态方面发挥着重要作用。它们通过改善线粒体生物发生来修复肾上皮细胞的缺氧损伤。
膳食蛋白质:通过菌群发酵,形成尿毒症毒素,加剧肾病
抵抗上消化道消化的膳食蛋白质是结肠微生物群的氮源。这些蛋白质在结肠中的命运主要取决于结肠菌群生长和发育所需能量的可用性,而结肠菌群主要来自碳水化合物发酵。
如果碳水化合物的利用率较高,蛋白质及其中间产物要么被同化为细菌生物量,要么在碳水化合物缺乏的情况下被梭菌和拟杆菌发酵为对甲酚、吲哚、酚和胺。
蛋白质发酵产物经过进一步加工,形成尿毒症毒素,如对甲酚硫酸盐和硫酸吲哚酚。
——尿毒症毒素如何导致肾病发展?
这些毒素由于与白蛋白有较高的亲和力(非共价相互作用)而在血液中循环,并由肾小管分泌物释放出来。如果尿毒症滞留溶质在体内积聚,则会增加肾小球硬化的发生率和肾脏疾病的进展。因此,它们在血液中的浓度可以用来衡量肾脏的功能效率。
硫酸吲哚酚和对甲酚硫酸盐的其他毒性作用包括炎症反应增加、内皮功能障碍、血管钙化、氧化应激增强、红细胞生成减少、细胞衰老增加、血栓形成、动脉粥样硬化形成,左心室肥厚、胰岛素抵抗、肾小管-间质纤维化和肾素-血管紧张素-醛固酮系统激活。
膳食脂肪:高脂饮食导致TMAO升高,与慢性肾病进展直接相关
胆碱、肉碱和卵磷脂是膳食脂肪的主要成分。哺乳动物缺乏打破这些脂肪成分的氰化物键所需的酶。
然而,结肠微生物群有TMA裂解酶,可以破坏氰化物键。胆汁中的TMA裂解酶和肝酶(即含黄素的单加氧酶)的联合作用导致肉碱和胆碱形成TMAO。
2021年发表在Science期刊上的一篇文章指出,高脂饮食会损害结肠上皮细胞线粒体的功能,使肠道氧气和硝酸盐的浓度增加,促进大肠杆菌的生长以及对胆碱的分解,导致TMA水平增加,最终导致循环中有害代谢物TMAO水平的升高。
——TMAO的升高会发生什么?
TMAO与其他尿毒症毒素一样,进入身体循环,并由肾脏释放。TMAO增加与慢性肾病进展直接相关。与健康对照组相比,终末期肾病患者体内的TMAO浓度可高出20倍。
TMAO高导致有害后果,如血小板活性增加、血栓形成潜能、肾小管间质纤维化和动脉粥样硬化的发展。
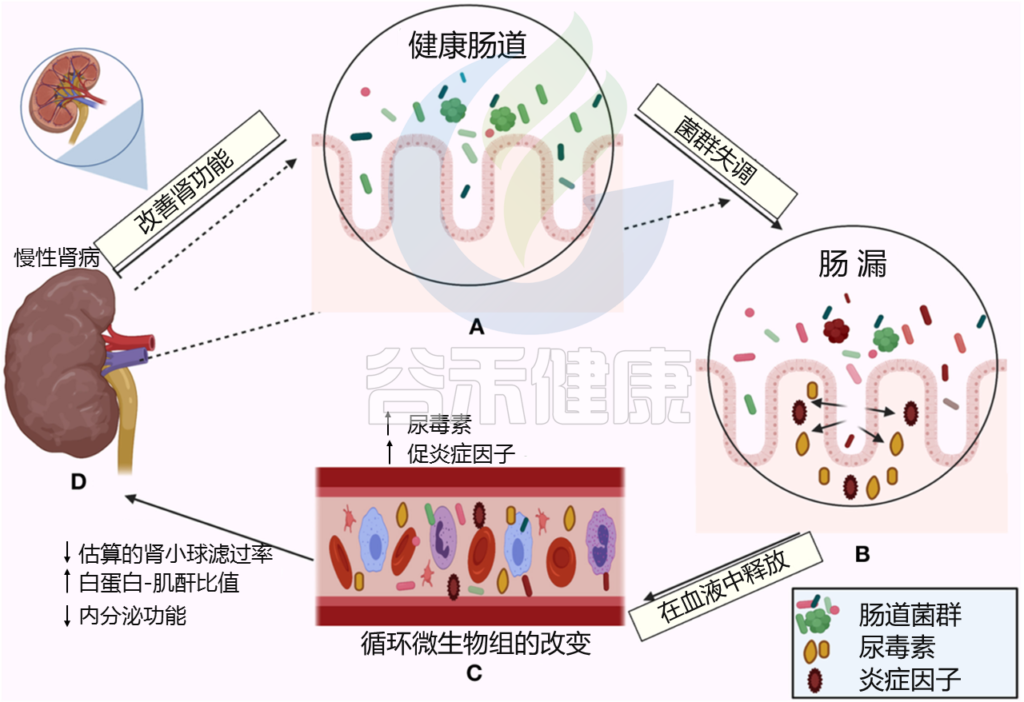
Al Khodor D, et al., Frontiers in Medicine,2022
← 在一个方向上,肠道菌群影响肾脏:
(A)健康的肠道
(B)肠道微生物失调和破坏粘膜层
(C)释放血液中炎性因子和炎症级联的开始,尿毒症毒素积累
(D)估计的肾小球滤过率下降(eGFR),白蛋白肌酐比值(ACR)升高,肾脏内分泌功能丧失
→ 在另一个方向,慢性肾病驱动肠道内的生态失调(虚线箭头所示),并引发炎症级联
尿毒症患者的微生物群组成与健康人不同。据观察,在接受血液透析的尿毒症患者中,需氧菌如肠杆菌和肠球菌增加很多倍,而厌氧菌如双歧杆菌则减少。
5期慢性肾病患者体内含有短链脂肪酸形成酶的细菌较少;然而,其中含有更多的脲酶、尿酸酶、吲哚和对甲酚产生菌。
另一项研究发现,在区分慢性肾病患者和健康对照组方面表现最好的两种菌:
Lachnospira 和 Ruminocococus gnavus
慢性肾病进展和血液透析和Holdemanella、巨单胞菌、普雷沃氏菌属Prevotella和Scardovia有关。
关于慢性肾病的进一步报告表明,慢性肾病是一种蛋白质发酵增加的状态,与肾功能恶化有关。发现这些细菌蛋白发酵产生的代谢物(对甲酚硫酸盐、吲哚硫酸盐和苯乙酰谷氨酰胺)与肾功能呈负相关。
结肠微生物群通过其代谢产生尿毒症毒素,其失衡可能导致上皮屏障损伤。尿毒症毒素的增加会降低紧密连接蛋白的表达,如紧密连接蛋白(ZO-1)、闭合蛋白、claudin-1。
急性肾损伤也有各种原因引起的,有感染性的,败血症性的,脓毒性的等。
感染性急性肾损伤:
肾功能受损->肠道通透性增高->全身炎症->肾功能进一步损伤
患者的炎性细胞因子增加,肾功能受损,导致肠道损伤。细胞因子水平的增强作用于胃肠道壁的连接复合体;因此,通过改变紧密连接蛋白的表达,导致其通透性增高。此外,增加的肠道通透性会以正反馈方式放大全身炎症反应。增强的全身炎症进一步促进肾功能障碍。
败血症性急性肾损伤:
水分潴留->肠壁水肿->尿素代谢->破坏屏障->细菌移位->炎症->衰竭
该类患者中,钠、尿素、尿毒症溶质和水的潴留是由于其肾功能障碍引起的。过多的水分滞留导致肠壁水肿显著增加。来自体循环的尿素扩散到胃肠道腔,肠道细菌脲酶在那里代谢尿素。
尿素转化为氨[CO(NH2)2+H2O→ CO2+2NH3]
进一步代谢为氢氧化铵(NH3+H2O→ NH4OH)
此后,肠道菌群产生的氢氧化铵(NH4OH)作用于连接蛋白,破坏上皮屏障(图1)。
受损的上皮屏障导致肠腔毒素流入,同时细菌从肠腔转移到肠系膜淋巴系统和体循环。这会促进局部和全身炎症,从而导致多器官衰竭和死亡。
脓毒性急性肾损伤:
外部+内部因素->菌群变化
患者的微生物组成发生改变,这可能是由于炎性细胞因子或上皮屏障受损。肠道菌群及其代谢产物能够改变胃肠道细菌细胞受体的表达,从而改变微生物组成。
肠道微生物组成也受到脓毒症患者肠道生理学各种变化的影响,这些变化可能是由于肠外营养和抗生素等外部因素,也可能是肠道渗漏和全身炎症等内部因素。
当使用微生物源性短链脂肪酸治疗时,败血症性AKI患者的肾功能得到改善。这种改善与低水平的细胞浸润/激活、炎症、氧化性细胞应激和凋亡有关。
一项确定蛋白质发酵代谢物对肠道微生物特征的作用的研究显示,梭菌有56个成员,在早期肾脏疾病中,以Christensenellae、Ruminococaceae和Lachnospiraceae为代表。
对终末期肾病患者的类似研究表明,从普雷沃氏菌向拟杆菌转变,产丁酸菌包括 Roseburia、粪球菌、梭菌、粪杆菌、普雷沃氏菌减少。
此外,他们还增加了来自下列菌的OTU:Brachybacterium, Catenibacterium,
Enterobacteriaceae, Moraxellaceae,
Nesterenkonia, Halomonadaceae,
Pseudomonadaceae, Polyangiaceae, Thiothrix
据报道,钙肾结石患者粪便微生物多样性降低,粪便杆菌、大肠杆菌和肠杆菌的代表性显著降低。
此外,在泌尿系结石病中,抗生素引起的泌尿道微生物群的长期变化从乳杆菌(健康保护)转变为肠杆菌科(促结石)。
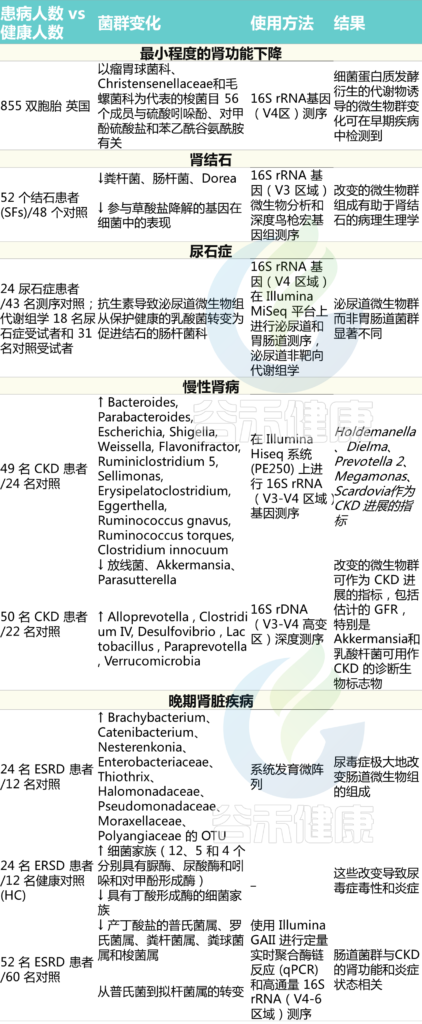
Ahlawat S,et al.,Lett Appl Microbiol. 2021
扩展阅读:慢性肾脏病中的人类微生物组:一把双刃剑
“酒精不一定是导致肝脏退化的罪魁祸首
肠道和肝脏之间的双向通讯网络涉及这些器官之间的相互关系,肝脏在这些器官中产生有益物质并被肠道吸收。
肠道菌群变化使肠道通透性增加,内毒素移位,肝毒素进入肝脏。
“肠道-肝脏轴”对于理解各种肝脏疾病的病理生理学至关重要。
肠道菌群如何与肝脏产生联系?
肝脏通过门静脉从肠道的静脉流出接收近70%的血液供应,因此,它持续暴露在肠道菌群及其代谢产物。
在健康个体中,进入肝脏的微生物代谢产物,如氨、乙醛和乙醇,由肝脏巨噬细胞(库普弗细胞)代谢。因此,肠道菌群对肝脏生理有很大影响。
肠道菌群变化如何导致肝脏受损?
炎症和门脉高压或肠道微生物组成变化导致的肠道上皮改变增加了肠道通透性。肠道通透性增加导致内毒素移位,导致肝脏中各种促炎基因和细胞因子的转录激活。由于肠道屏障受损,大量细菌及其代谢物如脂多糖(LPS)通过肝肠循环进入肝脏。
在激活LPS时,发生了一系列级联事件,通过NF-kβ介导的机制产生促炎症细胞因子,如TNF-α,这些细胞因子与肝损伤有关(图1)。
LPS是一种肝毒素;因此,暴露于肝脏会导致形态和功能改变。诱导的变化导致急性炎症反应和多形核细胞的积聚,通过从颗粒中释放蛋白酶、活性氧代谢物和其他酶,进一步加剧肝脏损伤。
肝硬化合并门脉高压导致肠道运动受损,促炎细胞因子释放增加,上皮通透性增加,从而影响肝脏。
对于理解各种肝脏疾病的病理生理学至关重要,如非酒精性脂肪肝(NAFLD)、脂肪性肝炎(NASH)、酒精性肝病(ALD)、肝癌发生和肝性脑病(HE)、急性或慢性肝衰竭、肝硬化的进展和并发症。
非酒精性脂肪肝是代谢综合征的一种肝脏表现,其原因是肥胖的普遍存在。
原发性脂肪性肝炎与肥胖、高脂血症和2型糖尿病(T2D)等代谢表现相关。而继发性脂肪性肝炎则是由于空肠回肠旁路手术、全肠外营养、快速减肥、脂肪营养不良或威尔逊氏病以及药物摄入所致。
肠道菌群在能量摄取中的作用
有趣的是,瘦肉型和肥胖型个体的肠道菌群成分不同,肥胖型个体具有的厚壁菌、普雷沃菌、卟啉单胞菌和更少的拟杆菌,这表明肠道菌群在肠道内容物的能量摄取中的作用。
此外,肠道菌群对能量收集和脂肪储存途径有影响,表明它们在胰岛素抵抗和相关代谢疾病的发展中起直接作用。在肥胖个体中,双歧杆菌与血清丙氨酸转氨酶水平呈负相关,丙氨酸转氨酶可作为非酒精性脂肪肝的标志物。
肠道通透性增加、小肠细菌过度生长
肠细胞释放乳糜微粒是脂肪代谢(代谢性内毒素血症)的结果,支持含LPS细菌的生长和移位。它会导致肠道失调和促炎细胞因子的释放(即由于LPS、乙醇和内毒素等细菌产物与TLR之间的相互作用),以应对肥胖。因此,非酒精性脂肪肝的发展主要取决于TLR-4或TLR-9和TNF-α受体的流行。
然而,非酒精性脂肪肝导致脂肪性肝炎的发生过程尚不清楚,但研究表明,产乙醇的肠道菌群的改变导致脂肪性肝炎的发生。肥胖患者的肠道菌群改变可诱导瘦素产生,通过STAT3信号上调CD14。这会导致对低剂量LPS的更高反应性,导致脂肪性肝炎中的肝脏炎症和纤维化。
非酒精性脂肪肝中的肠道菌群变化
在一项对86名经活检证实的非酒精性脂肪肝患者(72名患者患有轻度/中度非酒精性脂肪肝,14名患者患有晚期纤维化)的研究中,在轻度/中度非酒精性脂肪肝患者中,厚壁菌、Eubacterium rectale、普通拟杆菌Bacteroides vulgatus 数量丰富,而变形菌门,晚期(3-4期)纤维化患者中大肠杆菌和普通拟杆菌的比例过高。与轻度/中度非酒精性脂肪肝相比,晚期纤维化患者下列菌群显著减少:
Eu. rectale, Ruminococcus obeum , R. obeum
另一项针对非酒精性脂肪肝患者的研究显示,Alistipes和Prevotella的丰度较低。厌氧菌属、大肠杆菌属、链球菌属和乳酸杆菌属在这些患者中更为丰富。
紧密连接变宽,微绒毛排列异常,T淋巴细胞减少,TNF-α、IFN-γ和IL-6升高,揭示了肠道菌群介导的炎症在非酒精性脂肪肝发病机制中的重要性。
其他各类非酒精性脂肪肝中肠道菌群变化
一项针对100名患有2型糖尿病的非酒精性脂肪肝患者的研究中,50名糖代谢正常的非酒精性脂肪肝患者和60名对照组报告,患有2型糖尿病的非酒精性脂肪肝患者的双歧杆菌显著减少。然而,这两组患者的多形拟杆菌丰度均较低,而Eu. rectale ,Lactobacillus 较高。
在一项研究中,使用定量实时PCR进行肠道菌群肠道菌群结构分析,涉及11名单纯性脂肪变性(SS)患者、22名非酒精性脂肪性肝炎(NASH)患者和17名健康对照者(HC)。与单纯性脂肪变性患者和HC患者相比,脂肪性肝炎患者中的拟杆菌显著减少,而与SS患者相比,脂肪性肝炎患者中的Clostridium coccoides 更丰富。
另一项针对22名脂肪性肝炎患者、25名肥胖者和16名对照者的研究显示,肥胖和脂肪性肝炎患者的拟杆菌数量增加,厚壁菌数量减少。与对照组相比,脂肪性肝炎患者的放线菌丰度较低;然而,肥胖组和脂肪性肝炎组之间的变形菌存在显著差异(表1)。
肠道通透性增加、内毒素进入肝脏、促炎
酒精性肝病(ALD)是一系列肝脏疾病,包括脂肪肝、脂肪变性、急性酒精性脂肪性肝炎,酒精性肝纤维化和肝硬化是由成瘾性饮酒引起的,酒精及其代谢物(如乙醛)通过产生ROS导致肝损伤。
它们能够破坏上皮细胞紧密连接,从而导致肠道通透性增加。这会导致细菌易位,增加内毒素、LPS、细菌DNA和其他代谢物通过门静脉进入肝脏。库普弗细胞激活在ALD的发病机制中起着核心作用,LPS通过TLR-4或TLR-9激活库普弗细胞,导致促炎细胞因子的释放。
LPS、TLR-4和炎症细胞因子通过生长因子-β信号激活星状细胞,导致纤维化,这是一个的渐进过程。
酗酒者:
人类酗酒者的肠道菌群与健康对照组不同,前者的拟杆菌科减少,而后者的拟杆菌科增加。
酒精依赖综合征和酒精性肝硬化:
一项关于酒精依赖综合征(ADS)和酒精性肝硬化(ALC)的研究报告,肠杆菌科、拟杆菌、普氏杆菌、粪杆菌、克雷伯菌、乳球菌增加。然而,通过对肠道群落结构的比较,可以确定这两个群体之间差异丰富的分类群。尤其是,ADS患者的阿克曼病、粪球菌、未分类梭状芽胞杆菌显著减少。然而,ALC表现为拟杆菌、Blautia、双歧杆菌、链球菌、乳酸杆菌增加,普雷沃氏菌属、Paraprevotella、Alistipes 减少(表1)。
肝硬化:
肝硬化患者低水平的胆汁酸分泌和门脉高压会影响肠道菌群的组成和生长。肝硬化患者肠道内的病原体(链球菌科和肠杆菌科)增加,有益细菌(双歧杆菌和乳酸菌科)减少,从而导致生态失调。进一步的报道表明,拟杆菌门、变形菌门和毛螺菌科的比例降低;然而,肝硬化患者中梭杆菌类、肠杆菌科、韦荣球菌科和链球菌科的比例增加。
在另一项研究中,在肝硬化患者中观察到厚壁菌门比例降低,链球菌和韦荣球菌数量增加。在这些患者中,生物失调导致其他严重并发症,如菌血症、HE伴SIBO和肠道通透性增加。他极大地影响着生活质量;由于器官损伤和微生物产生的有毒物质(主要是氨,其他还有酚类、硫醇、苯二氮卓、短链和中链脂肪酸等)的综合作用,以认知功能受损为特征。
TH17与肠道菌群相互作用
肠道菌群在肝癌发生中的作用也很明显,研究表明,肠道菌群可以减少无菌小鼠的肝癌发生,丙酸盐可以抑制肝癌细胞的增殖。产生肿瘤内IL-17的T辅助细胞(Th17)通过与肠道菌群相互作用在肠道中生成。发现它们与肝细胞癌患者的不良预后相关,可能是由于血管生成和肠道菌群肿瘤生长的进展。
因此,从上述讨论中可以看出,不是单个微生物而是微生物失调会导致几种肝脏相关疾病。因此,可以得出结论,肠道菌群在通过“肠道-肝脏轴”维持个体健康方面起着关键作用。
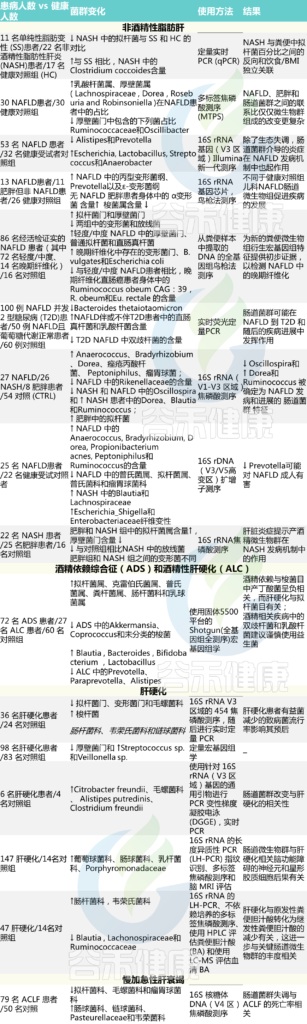
Ahlawat S,et al.,Lett Appl Microbiol. 2021
扩展阅读:深度解析 | 肠道菌群与慢性肝病,肝癌
“微生物代谢产物和骨骼健康
肠道菌群及其衍生分子对骨骼健康有影响。
肠道菌群对骨密度、骨强度、养分吸收产生影响。
饮食影响肠道菌群,从而影响骨骼健康。
骨骼:身体的支撑框架,细胞因子的仓库
人体骨骼对身体的整体功能起着至关重要的作用。除了作为身体的特殊支撑框架,骨骼还保护重要器官,充当钙稳态的矿物质储库,为骨髓(脂肪储存和血液形成)提供环境,并且是细胞因子和生长因子的仓库。
有趣的是,肠道菌群及其衍生分子对骨骼健康有影响。
最近的报告揭示了肠道和骨骼健康之间通过“肠道-骨骼轴”的复杂关联。在宫内和产后早期,暴露或限制环境因素可调节生长迟缓、骨矿化以及身体和肠道微生物组成。
肠道菌群对骨密度和骨强度的影响
各种临床前试验显示,乳酸杆菌是主要影响因素。骨丢失和肠道细菌过度生长验证了肠道、其微生物群和骨骼健康之间的沟通。肠道菌群通过各种潜在机制调节骨骼生长,如营养吸收、免疫系统成熟、释放各种代谢产物、改变胃肠道通透性、肠源性血清素和LPS诱导的全身炎症。
肠道菌群对养分吸收有重大影响
例如,胃肠道中长双歧杆菌和罗伊氏乳杆菌水平的增加通过钙、磷和镁等矿物质吸收水平的提高导致骨密度增加。肠道菌群在维生素B和K的合成中起着重要作用,维生素B和K对骨骼健康调节和胆汁酸代谢至关重要。
胆汁酸调节钙的吸收过程,就像脱氧胆酸抑制钙的吸收一样;然而,熊去氧胆酸会提高钙吸收过程。
饮食->肠道菌群->营养吸收->进一步影响骨骼
饮食对肠道菌群(碳水化合物作为主要能源)的组成有很大影响;因此,对营养吸收过程的影响进一步影响骨骼健康。有效的蛋白质含量对骨骼生长至关重要,而高蛋白饮食会导致胃肠道中甲烷和硫化氢等毒素的产生增加。
因此,饮食中适当的碳水化合物与蛋白质比例至关重要,任何偏差都会导致肠道菌群成分的破坏,从而可能导致骨代谢过程的故障。骨干细胞分化依赖于细胞因子等全身因素;此外,微生物群组成破坏导致的免疫改变会影响骨骼。
多种免疫因子参与骨代谢的调节
核因子-κB受体激活剂(RANK)、RANK配体(RANKL)和骨保护素(OPG)等多种免疫因子参与骨代谢的调节。
有两种类型的细胞,间充质干细胞来源的成骨细胞和单核细胞系来源的破骨细胞。单核细胞系细胞通过RANKL途径分化为巨噬细胞/树突状细胞或破骨细胞,具体取决于细胞周围的微环境。巨噬细胞集落刺激因子(M-CSF)的存在导致RANK表达增加,导致RANKL信号的刺激,最终通过形成破骨细胞导致骨吸收。
TNF-α、IL-6和IL-1等细胞因子也通过RANKL途径直接或间接放大骨吸收,因为细胞因子增加髓系细胞上RANK受体的表达。然而,OPG(RANKL的天然受体)阻止它与RANK结合,从而减少破骨细胞的生成过程。OPG的主要来源是B细胞,炎症状态下B细胞的失调导致B细胞RANKL表达升高,OPG表达降低,从而导致更高水平的骨吸收和破骨细胞过度生成。
血清素水平的增加与骨量的减少有关
据报道,肠道菌群通过维持代谢激素5-羟色胺或5-羟色胺(5-HT)的水平来影响骨代谢,5-羟色胺是由肠道嗜铬细胞在色氨酸羟化酶-1(Tph1)酶的帮助下合成的。由于这两种细胞类型,即骨细胞和成骨细胞都有5-HT受体,它通过5-HT信号转导途径在骨发育和维持的调节中起主要作用。
短链脂肪酸等微生物产物在骨密度调节中发挥作用
短链脂肪酸通过OPG和Runx信号通路参与骨矿化和骨形成;然而,丁酸通过抑制RANKL信号通路减少破骨细胞的生成过程。研究表明,短链脂肪酸通过潜在影响宿主内分泌因子(如胰高血糖素样肽1(GLP-1)和肽YY(PYY))的功能,在维持骨密度方面发挥间接作用,这些内分泌因子与骨代谢有关。
PYY和GLP-1均由胃肠道内分泌L细胞分泌,其中GLP-1通过破坏成骨细胞和脂肪细胞之间的平衡,从骨髓间充质干细胞分化为骨代谢调节器。然而,在绝经前妇女中,PYY与全身和髋部骨密度之间存在矛盾的联系。
肠道菌群改变激素水平影响骨骼健康
肠道菌群还通过改变肠道来源的非卵巢雌激素(如己烯雌酚和类黄酮)水平影响骨骼健康。雌激素水平低是绝经后骨质疏松风险的主要因素。
其他疾病中,肠道菌群和骨骼健康的联系
克罗恩病(CD)和肥胖会增加骨折风险,因此,将骨密度和肠道菌群联系起来。
早些时候,一项用于测定类风湿性关节炎(一种关节慢性炎症性疾病)中肠道菌群改变的研究显示乳酸杆菌显著增加。
另一份报告显示拟杆菌、普雷沃菌,Porphyromonas的数量较低。然而,最近的一项研究表明,以下菌群比例过高:Porphyromonadaceae, Carnobacterium, Parabacteroides, Phascolarctobacterium, Bacteroides, Paraprevotella. 此外,据报道,产生丁酸盐的粪杆菌、Roseburia、Subdoligranulum、瘤胃球菌、Pseudobutyrivibrio 数量减少。
类似地,强直性脊柱炎(关节炎的一种形式)患者在回肠末端有离散的微生物特征,属于毛螺菌科、卟啉单胞菌科、瘤胃球菌科、拟杆菌科、Rikenellaceae的细菌数量增加。Prevotellaceae和Veillonellaceae科细菌的丰度降低(表1)。
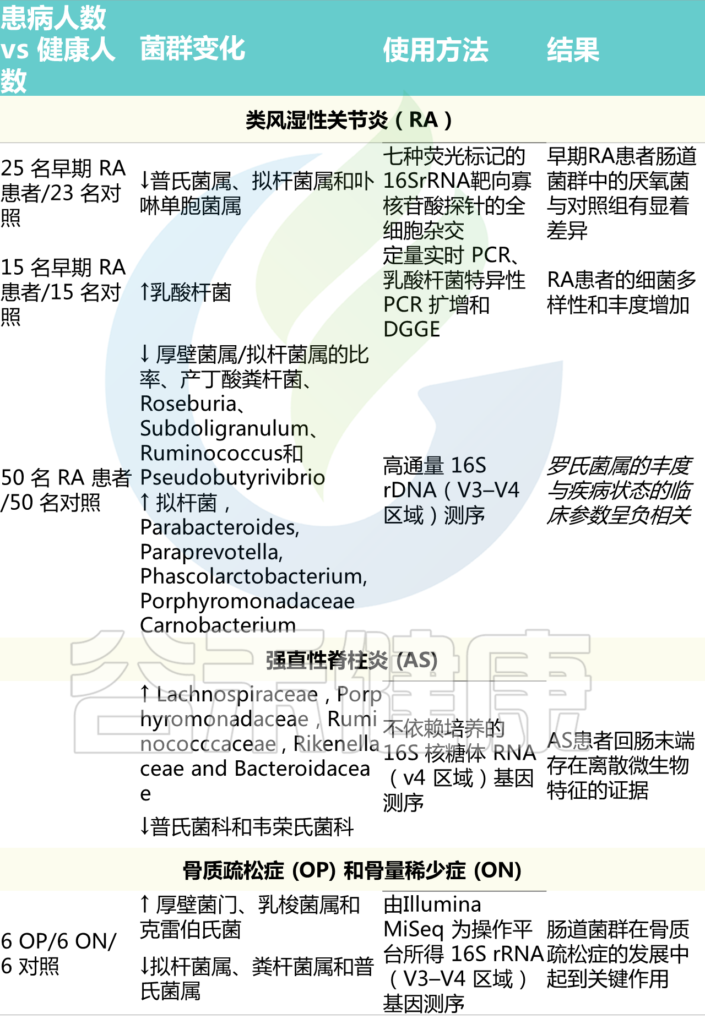
Ahlawat S,et al.,Lett Appl Microbiol. 2021
扩展阅读:肠道微生物组:肌肉骨骼研究的新领域
“肠道健康对容光焕发的皮肤的重要性
皮肤内稳态和外稳态与胃肠道有关,皮肤和肠道之间存在双向沟通。
胃肠道疾病和饮食都会影响皮肤的病理生理学。
肠道菌群通过产生短链脂肪酸、免疫系统修饰等影响皮肤健康。
各类皮肤病中肠道菌群的作用。
皮肤和肠道对维持生理内环境平衡至关重要。它们具有多种共同特征,如大量微生物群的定植、高度神经支配、大量血管化,并提供与外部环境的接口。皮肤再生过程对于维持其内环境稳定状态非常重要,这是通过持续更新和有效的表皮更新来实现的。
处于稳态的皮肤可以执行各种基本功能,如温度调节、保护和保水。皮肤内稳态和外稳态与胃肠道有关;因此,考虑到皮肤和肠道之间的双向沟通。尽管肠道和皮肤关系的完整机制尚不清楚;然而,研究表明,它涉及代谢系统、免疫系统、神经系统和内分泌系统之间的复杂通信网络。
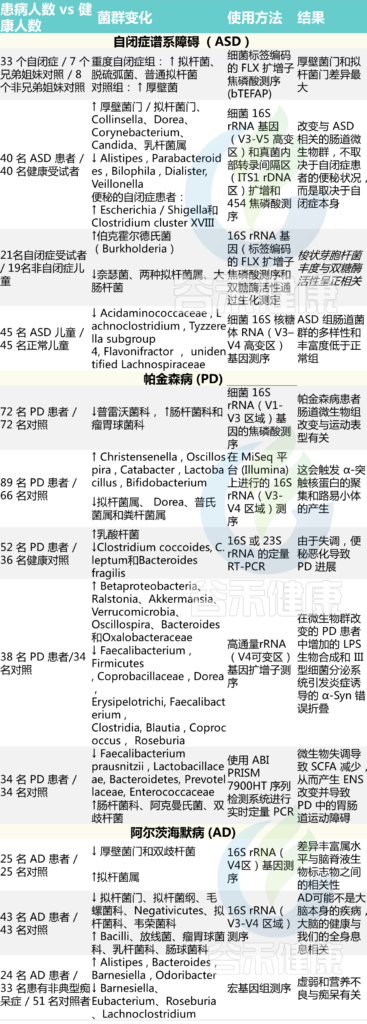
胃肠道疾病和饮食都会影响皮肤的病理生理学,皮肤表现与某些胃肠道疾病有关。
皮肤通常由四个细菌门控制,包括拟杆菌门、变形菌门、放线菌门和厚壁菌门。
肠道菌群通过产生短链脂肪酸影响皮肤微生物群
短链脂肪酸在决定皮肤微生物群物种的流行程度方面具有重要作用,从而影响皮肤免疫反应机制。通过抑制炎症细胞的粘附、迁移、增殖和细胞因子的产生,短链脂肪酸(尤其是丁酸)减缓了免疫反应。短链脂肪酸还通过组蛋白去乙酰化酶(HDAC)抑制和NF-kB信号通路失活在调节免疫细胞凋亡和激活中发挥作用。
许多皮肤生理功能,如伤口愈合和毛囊干细胞分化的调节,都受皮肤调节细胞的控制,其增殖受到HDAC抑制的刺激。
重要的皮肤菌——表皮葡萄球菌和痤疮丙酸杆菌
有趣的是,据报道,两种最显著的皮肤共生菌,即表皮葡萄球菌和痤疮丙酸杆菌能够耐受短链脂肪酸的显著变化。丙酸杆菌本身产生类似丙酸和乙酸盐的短链脂肪酸。丙酸对条件致病菌耐甲氧西林金黄色葡萄球菌具有抗菌作用。
补充副干酪乳杆菌NCC2461降低皮肤敏感性
在皮肤的功能中,屏障功能可以防止病原体入侵以及皮肤水分、电解质和蛋白质的流失。经表皮失水(TEWL)是一种测量稳态水蒸气穿过皮肤进入环境的通量,已被用作皮肤屏障功能的标志。人类临床研究表明,服用短乳杆菌SBC8803口服补充剂12周后,角膜水合作用显著增加,TEWL降低。同样,补充副干酪乳杆菌NCC2461 2个月的个体TEWL和皮肤敏感性降低。
肠道微生物组主要通过免疫系统修饰影响皮肤健康
它通过影响T细胞对各种免疫刺激的反应,从而增强皮肤的异质性。Th-17细胞数量异常或更高,以及促炎细胞因子与白塞病(BD)等多种炎症表现有关。这验证了肠道菌群在通过免疫系统修饰维持皮肤健康方面的关键作用。
免疫改变、皮肤屏障功能障碍
特应性皮炎(AD)是一种皮肤炎症性疾病,其发病机制主要由免疫反应改变和皮肤屏障功能障碍控制。由于Th1/Th2比率中断,以细胞因子产生增加(IL-4、IL-5和IL-13)为标志的免疫改变导致IgE水平升高,并增加金黄色葡萄球菌与特应性皮炎患者皮肤的结合。这种免疫失衡是由于存在特定类型的微生物群时,炎症微环境导致肠道菌群及其代谢物发生改变的结果。
特应性皮炎患者肠道菌群增加了金黄色葡萄球菌、大肠杆菌、艰难梭菌的数量,其中拟杆菌和双歧杆菌减少。
另一项针对特应性皮炎患者的研究显示,Faecalibacterium prausnitzii在亚种水平上存在失调,丙酸盐和丁酸盐的产生量较低,包括与菌株A2-165相关的产生量。它导致皮肤对过敏原产生异常的Th2型免疫反应(表1)。此外,还发现大肠杆菌和梭菌通过嗜酸性炎症与特应性皮炎相关。
然而,屏障功能障碍的主要遗传原因是丝聚蛋白(filaggrin)基因突变导致的功能丧失,这对维持表皮内环境稳定至关重要,因为丝聚蛋白基因有助于屏障功能和保水。因此,对环境抗原的易感性增加和TEWL增加可能是该特定基因突变的结果。
逐渐地,已确定的肠道菌群失调以及免疫系统失衡持续到成年,从而导致疾病的自然病程。肠道菌群破坏降低了其调节宿主免疫系统的能力。这会导致局部和系统性炎症,如牛皮癣(银屑病)。
扩展阅读:微生物群对三大过敏性疾病发展的影响
生命早期微生物接触和过敏风险:如何预防
菌群变化、肠道炎症
据报道,牛皮癣患者的肠道菌群多样性较低,粪球菌数量减少。
此外,一项针对15名银屑病患者、16名银屑病关节炎(PsA)患者和17名对照受试者的研究显示,银屑病和PsA患者中的粪球菌数量均减少。同时,PsA患者的Akkermansia、瘤胃球菌和假丁酸菌数量减少(表1)。
银屑病可导致身体其他器官发炎。据报道,7–11%的炎症性肠病患者患有银屑病,银屑病进一步将皮肤与胃肠道连接起来。
发现银屑病患者的血浆中含有肠道细菌的DNA。其他皮肤表现如酒渣鼻与幽门螺杆菌感染有关。这些患者的SIBO发病率更高,通过产生有毒代谢物导致肠道通透性、肠细胞损伤和全身炎症。
扩展阅读:牛皮癣看似皮肤病,实则关系到肠道
阻塞、炎症、痤疮杆菌介导、mTOR途径
痤疮,一种较常见的皮肤异常,是由于皮脂分泌过多、导管阻塞和炎症引起的,由痤疮杆菌介导。对寻常痤疮患者粪便的高通量测序显示,变形菌数量增加,放线菌、双歧杆菌、丁酸杆菌、共细菌、乳酸杆菌和异杆菌的数量减少(表1)。
据报道,痤疮的病理生理学受到mTOR途径和肠道菌群之间双向通讯的影响。
在一个方向上,肠道代谢物对mTOR途径介导的代谢过程具有调节作用,如脂质代谢和细胞增殖。或者,mTOR途径通过调节肠道屏障的完整性来影响肠道菌群成分。
扩展阅读:痘痘?粉刺?皮肤问题很可能是肠道问题
这7种类型的食物可能引起 “痘痘”
菌群变化
湿疹的标志是双歧杆菌、巨球菌、嗜血杆菌、脆弱拟杆菌和唾液链球菌的丰度降低。此外,这些患者以下菌群数量增加:
Escherichia/Shigella, Veillonella, Clostridium XlVa,
Lachnospiraceae incertae sedis, F. prausnitzii,
Ruminococcus gnavus, A. muciniphila
免疫功能障碍、菌群变化
研究表明,肠道菌群的改变与白塞病患者的免疫功能障碍有关。这些患者双歧杆菌和埃格特菌的数量增加,而巨单胞菌和普氏杆菌的数量减少(表1)。
总之,这些发现为皮肤和肠道之间的功能互动机制提供了强有力的支持性证据。
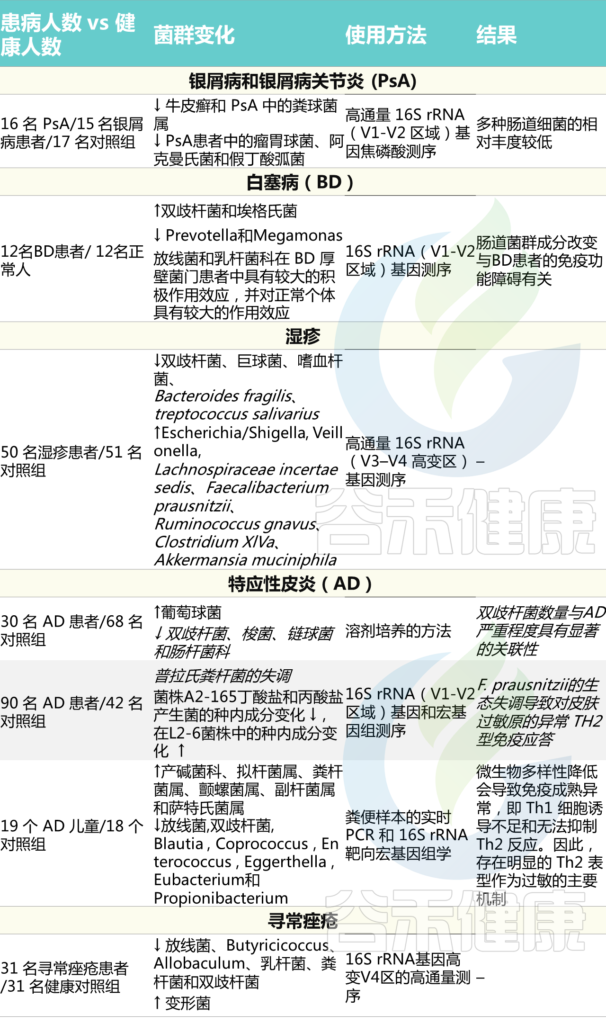
Ahlawat S,et al.,Lett Appl Microbiol. 2021
“肠道菌群和能量平衡
脂肪介导的小肠效应可能有助于理解脂肪介导的代谢紊乱的病因。
肠道脂肪吸收可以根据饮食中的脂肪含量进行调整。
肠道菌群通过与脂肪组织的通讯轴影响代谢
膳食脂肪的消化吸收过程
在我们的饮食中,甘油三酯(TAG)几乎占膳食脂质的95%。在吸收之前,它在胃中被酸性稳定的胃脂肪酶部分水解成二酰甘油(DAG)和游离脂肪酸(FFA)。
它在小肠中继续消化,在小肠中,依赖于脂肪酶的胰脂肪酶释放2-单酰甘油(MAG)和长链脂肪酸(LCFA)。长链脂肪酸具有可能对细胞完整性有害的清洁剂特性。因此,它们分散在肠腔中的胶束中,与肠吸收细胞中的脂质结合蛋白结合,并作为富含甘油三酯的脂蛋白(乳糜微粒)分泌到淋巴中,这些脂蛋白被内皮脂蛋白脂肪酶进一步水解,为外周组织提供长链脂肪酸。
小脂蛋白中剩余的甘油三酯和残余物被肝脏脂肪酶进一步水解,并被肝脏从血液中清除。因此,膳食脂肪的高效消化和吸收确保了长链脂肪酸正确供应到发挥各种基本细胞功能的身体。
脂肪吸收可以根据饮食中的脂肪含量进行调整
小肠是一种选择性屏障,可有效吸收膳食脂肪并负责其处置。新出现的数据表明,肠道的甘油三酯的高生物利用度是后天获得的特性。
这表明肠道脂肪吸收可以根据饮食中的脂肪含量进行调整。有趣的是,这些脂质介导的肠道适应防止了高脂肪饮食期间粪便中脂质的过度清除。
因此,在食物匮乏的环境中提供生存优势。相反,在食物充足的时期,它们会增加肥胖和相关疾病的患病率。
总之,这些数据强调,脂肪对小肠的影响可能是促成脂肪介导的代谢紊乱的病因。
过度摄入脂肪的肥胖,引起系列代谢紊乱
过度摄入脂肪会增加肥胖的风险,肥胖涉及一系列代谢改变,如葡萄糖稳态紊乱(胰岛素抵抗和2型糖尿病或T2D)、心血管疾病(CVD)或风险因素(如高血压)和非酒精性脂肪肝。它涉及器官间(肠-脂肪组织和肠-大脑)通讯网络的严重紊乱,这有助于能量消耗、脂肪组织发育和胰岛素抵抗的改变。然而,并非所有肥胖者都有胰岛素抵抗和糖尿病。
它与两个主要细菌分类的相对丰度的改变有关,即拟杆菌减少,厚壁菌增加。因此,微生物组从饮食中提取能量的能力更高。
肠道菌群不仅是代谢紊乱的结果,也可能是原因
有几项研究将肠道双歧杆菌数量的减少与肥胖和/或糖尿病的发病联系起来。然而,现有证据表明,肠道菌群成分的改变不仅仅是结果,还可能导致肥胖。
高脂饮食改变菌群引发炎症反应,导致代谢综合征
高脂饮食也与肠内拟杆菌相对丰度降低、含LPS细菌丰度增加以及血浆LPS水平升高(称为代谢性内毒素血症)有关,通过增加LPS-TLR4结合增强局部炎症反应。
其次是脂肪/肠系膜脂肪组织积聚和胰岛素抵抗。胰岛素敏感性受绕过LPS诱导的CD95介导的髓样细胞炎症的影响。然而,在生理学上,局部肠道炎症是一种调节肠道屏障功能和促进乳糜微粒转运的适应,以在脂质摄入增加的情况下存活。但长期高脂肪摄入和肠道菌群改变会在肠道引发持续/慢性低度局部炎症反应,进而导致代谢综合征(图1)。
代谢异常也受脂肪分布的影响。中枢性肥胖的个体,脂肪主要集中在上胸廓和腹腔内沉积,更容易发生这种异常。
肠道菌群通过与脂肪组织的通讯轴影响代谢
由生物活性脂质组成的内源性大麻素(eCB)系统可以调节肠道和脂肪组织之间的联系。它通过与大麻素受体结合而引发细胞信号。此外,它的严格调控依赖于特定酶的合成和降解之间的平衡。它在控制能量平衡的组织中表达,因此,其失调会导致各种代谢状况,包括肥胖和2型糖尿病。
免疫反应诱导胰岛素抵抗,维持平衡,但长时间会引起代谢异常
免疫细胞尤其是巨噬细胞(具有LPS受体)对代谢内毒素血症的反应,增加白色脂肪组织浸润,产生炎症免疫反应,增强IL-6和TNF-α,从而诱导胰岛素抵抗,以维持饥饿和感染条件下的体内平衡。
然而,在肥胖患者中观察到的,如果它持续很长时间,就会产生有害影响,并导致代谢异常。
类似地,肠屏障功能受损和肠系膜脂肪大量积聚的克罗恩病患者中,细菌向肠系膜脂肪的移位增加。
脂肪细胞肥大->游离脂肪酸升高->代谢紊乱
LPS可以降低前脂肪细胞中过氧化物酶体增殖物激活受体γ(PPARγ)的表达,即脂肪生成(脂肪细胞分化和脂肪生成)的关键调节因子,并激活eCB的产生。这会对前脂肪细胞分化产生不利影响,并导致脂肪细胞肥大。
肥大脂肪细胞沉积游离脂肪酸的能力受损,从而导致循环游离脂肪酸水平升高,从而导致基础脂肪分解(图1)。
相反,它们会释放更多的游离脂肪酸和炎性细胞因子,包括脂肪因子,也就是不好的代谢特征。
总之,肝脏代谢受内脏脂肪和肠道分泌特征的影响。在肥胖个体中,内脏脂肪沉积物中的FFA和促炎细胞因子以及肠道进入门静脉循环的内毒素(LPS)的释放增加对肝脏胰岛素敏感性产生负面影响,这可能导致代谢综合征的发生。这证实了“肠道脂肪组织”和肝脏之间存在一个网络。
扩展阅读:体重增长:目前为止我们所知道的一切(更新你的减肥工具箱)
2型糖尿病如何做到可防可控?肠道菌群发挥重要作用
“双向通信网络
大多数心血管疾病风险因素,都会导致与肠道炎症和肠道屏障完整性降低相关的生态失调。
肠道和心脏之间双向沟通,“肠道-心脏轴”
肠道菌群参与各类心血管疾病的进展。
心血管疾病由多种风险因素引起,分为可改变的(饮食和生活方式)和不可改变的(年龄和遗传学)。
几项研究表明,肠道菌群与宿主生理过程保持着复杂的关系,因此表明它是心血管疾病风险的基因外因素。
大多数心血管疾病风险因素都会导致与肠道炎症和肠道屏障完整性降低相关的生态失调,提高肠道细菌结构成分和循环中微生物代谢产物的水平,从而加快了心血管疾病的发展。
一些影响心脏的疾病,如代谢综合征或肥胖症,与出生后微生物组的获取受到干扰或不足有关,或与儿童时期肠道微生物组中存在特定细菌或细菌家族的环境微生物的早期接触有关。
此外,患有肠易激综合征等肠道疾病的患者患冠心病的风险增加。这表明肠道和心脏之间存在额外的连接。
以上证据共同表明,肠道和心脏之间存在双向通信网络,即“肠道-心脏轴”。
越来越多的数据表明,肠道在心力衰竭(HF)的病理生理学中起着至关重要的作用。
心力衰竭患者损害肠道,导致疾病发展
心力衰竭患者会出现外周血管收缩、心输出量减少和组织充血等障碍,这些障碍会在结构和功能上损害肠道,导致肠道血流量减少、肠壁增厚(结肠和回肠末端),增加(小肠中)胶原蛋白的积累和血流动力学改变。由于缺氧诱导的肠缺血,这些微循环障碍在功能上损害了肠上皮细胞,从而损害营养吸收,导致疾病发展和营养不良。
肠道细菌及其产物转移到循环中,诱发炎症反应
屏障功能障碍导致肠道细菌及其产物转移到循环中。当进入循环系统时,肠道细菌源性内毒素(如LPS)结合其受体,即心肌细胞上的Toll样受体4(TLR-4)。这种结合与循环细胞因子(TNF-α)增加、结构组织损伤、收缩力下降和心功能受损等炎症反应的诱导有关。LPS还会触发吞噬细胞和粒细胞释放儿茶酚胺,从而对肠道灌注产生额外的不利影响。
心力衰竭与菌群失调有关
最近,心衰患者的肠道菌群分析表明,肠道菌群发生了显著改变, 以下菌群较少:
Dorea longicatena 、 Eu. rectale
菌群随着年龄的不同而进一步变化,因此老年心力衰竭患者(60岁或以上)的拟杆菌和粪杆菌数量较少,变形菌和乳酸杆菌比例较大。
另一项针对慢性心力衰竭(CHF)患者的研究显示,患者的肠壁厚度增加,三氯蔗糖和乳果糖/甘露醇的通透性增加,D-木糖吸收减少,同时乙状结肠粘膜生物膜中的粘附细菌水平升高。这些变化共同导致肠道缺血、慢性炎症和营养不良。
此外,与健康对照组相比,CHF患者肠道内念珠菌和沙门氏菌、弯曲菌、志贺氏菌和小肠结肠炎耶尔森氏菌等病原菌过度生长(表1)。
心力衰竭和代谢产物的异常产生有关
肠道菌群衍生的代谢物也会促进疾病进程。尿毒症毒素,如TMAO、对甲酚硫酸盐和吲哚氧基硫酸盐,是从饮食摄入的微生物发酵中产生的。硫酸吲哚氧基对心脏有促肥大和促纤维化作用,而TMAO是预测心血管疾病风险的一个有前途的生物标志物。
一项大型队列研究表明,在接受选择性冠状动脉造影的患者中,血浆TMAO水平升高与心肌梗死、中风和死亡风险增加有关。此外,心力衰竭患者的TMAO血浆水平也明显高于健康对照组。
动脉粥样硬化涉及代谢和炎症成分,受肠道菌群变化的影响
新出现的报告提出了一种新的途径,将膳食脂质摄入、肠道菌群和动脉粥样硬化联系起来。从膳食磷脂酰胆碱(卵磷脂)中产生甜菜碱、胆碱和TMAO代谢物取决于肠道菌群的代谢,TMAO与心血管疾病风险呈最强正相关。
根据一项研究,TMAO可减少胆汁酸的合成,并抑制胆固醇的逆向转运,而胆固醇的逆向转运与动脉粥样硬化的增加有关。然而,确切的机制仍然难以捉摸。
此外,人们认为慢性肺炎衣原体和幽门螺杆菌感染以及随后的免疫反应对动脉粥样硬化的发展至关重要。
LPS升高与动脉粥样硬化有什么样的关联?
各种研究支持血清LPS(内毒素)水平升高与动脉粥样硬化之间的关联。IBD或肝硬化患者的肠道屏障功能受损,导致血清LPS水平升高,动脉粥样硬化发生率增加。
LPS通过与低密度脂蛋白(LDL)相互作用影响脂蛋白代谢,诱导内皮细胞损伤,刺激超氧阴离子释放和低密度脂蛋白氧化。氧化低密度脂蛋白有利于巨噬细胞释放细胞因子(IL-1和TNF-α),刺激巨噬细胞转化为泡沫细胞。这些特征共同促进动脉粥样硬化的发展和进展。
肠道菌群参与动脉粥样硬化性心血管疾病的发展
动脉粥样硬化斑块和同一个体的肠道中存在不同种类的细菌DNA,表明肠道菌群是动脉粥样硬化细菌的潜在来源。因此,肠道菌群可能参与冠心病的发病和进展。
在早期的研究中,动脉粥样硬化性心血管疾病患者中链球菌属和肠杆菌科的比例高于健康对照组。另一项针对症状性动脉粥样硬化患者的研究显示,与健康对照组相比,症状性动脉粥样硬化组的Collinsella数量增加,Eubacterium ,Roseburia比例降低(表1)。
此外,肠道菌群是多种疾病的风险因素,如代谢综合征、肥胖、糖尿病和动脉粥样硬化,这些疾病与高血压有关。
高血压的发病机制是复杂的、多因素的。由细菌诱导的膳食纤维厌氧发酵在肠道产生的短链脂肪酸在调节血压(BP)方面具有生理功能。短链脂肪酸的高血压和降压作用分别通过与受体Olfr78和GPR41结合来介导(图3)。
图3 “肠道-心脏”轴
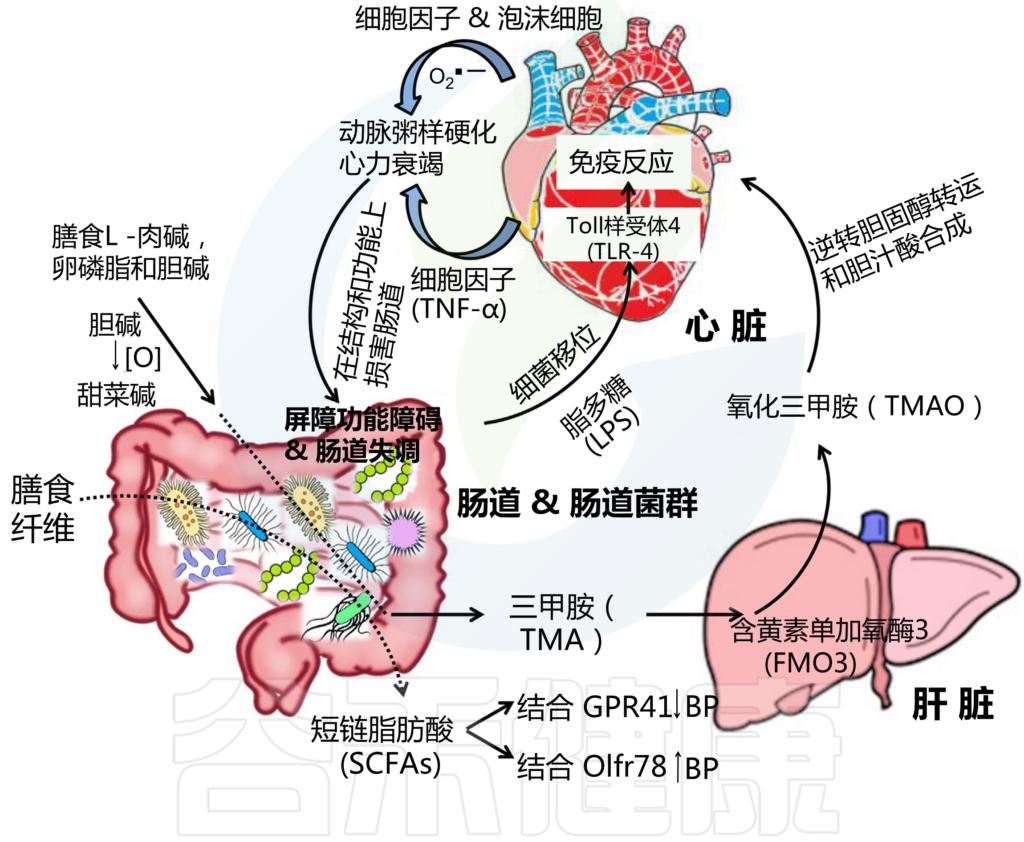
Ahlawat S,et al.,Lett Appl Microbiol. 2021
最近一项针对56名高血压前期(pHTN)、99名原发性高血压(HTN)患者和41名健康对照(HC)的研究表明,在pHTN和HTN两组中,产生短链脂肪酸的F. prausnitzii 和 Roseburia 均减少。
另一份报告提出了条件致病菌(Parabacteroides merdae, Klebsiella, Streptococcus)在高血压发病机制中的作用(表1)。
扩展阅读:认识肠道微生物及其与高血压的关系
总之,血压与肠道菌群的多样性、丰富度和均匀度密切相关,并受厚壁菌/拟杆菌比率的影响。
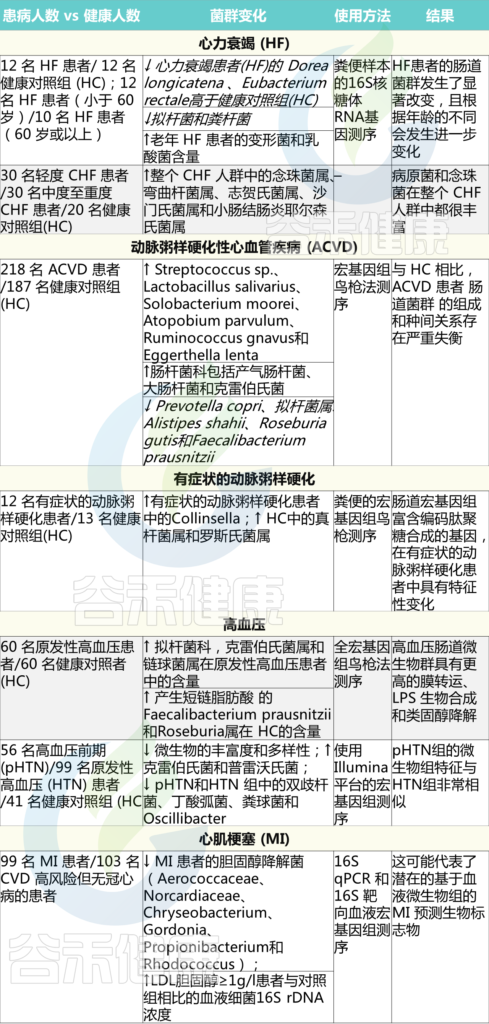
Ahlawat S,et al.,Lett Appl Microbiol. 2021
扩展阅读:与心血管疾病相关的肠道菌群代谢产物或毒素
最新 | 肠道微生物群与心血管疾病:机遇与挑战
微生物群与宿主之间的相互作用对维持内稳态很重要,但这种相互作用一旦受到干扰,就会成为许多慢性疾病的核心驱动因素。
目前随着对肠道菌群的了解逐步深入,我们开始了解它们的信号以及与人类健康和相关疾病的相关性。当然还有更多需要探索的问题,肠道菌群的改变是导致疾病的原因还是仅仅反映疾病状态,应该如何针对菌群作出精准干预等。
当我们真正开始理解微生物彼此之间的关系,及其与宿主之间复杂多变的进化和生态关系时,对疾病的机制理解就会越来越清晰,从而在菌群的基础上进行有效的干预措施。
主要参考文献:
Ahlawat S, Asha, Sharma KK. Gut-organ axis: a microbial outreach and networking. Lett Appl Microbiol. 2021 Jun;72(6):636-668. doi: 10.1111/lam.13333. Epub 2020 Jul 16. PMID: 32472555.
Yoo W, Zieba JK, Foegeding NJ, Torres TP, Shelton CD, Shealy NG, Byndloss AJ, Cevallos SA, Gertz E, Tiffany CR, Thomas JD, Litvak Y, Nguyen H, Olsan EE, Bennett BJ, Rathmell JC, Major AS, Bäumler AJ, Byndloss MX. High-fat diet-induced colonocyte dysfunction escalates microbiota-derived trimethylamine N-oxide. Science. 2021 Aug 13;373(6556):813-818. doi: 10.1126/science.aba3683. PMID: 34385401; PMCID: PMC8506909.
Rinninella E, Raoul P, Cintoni M, Franceschi F, Miggiano GAD, Gasbarrini A, Mele MC. What is the Healthy Gut Microbiota Composition? A Changing Ecosystem across Age, Environment, Diet, and Diseases. Microorganisms. 2019 Jan 10;7(1):14. doi: 10.3390/microorganisms7010014. PMID: 30634578; PMCID: PMC6351938.
Parikh K, Antanaviciute A, Fawkner-Corbett D, Jagielowicz M, Aulicino A, Lagerholm C, Davis S, Kinchen J, Chen HH, Alham NK, Ashley N, Johnson E, Hublitz P, Bao L, Lukomska J, Andev RS, Björklund E, Kessler BM, Fischer R, Goldin R, Koohy H, Simmons A. Colonic epithelial cell diversity in health and inflammatory bowel disease. Nature. 2019 Mar;567(7746):49-55. doi: 10.1038/s41586-019-0992-y. Epub 2019 Feb 27. PMID: 30814735.
Lun H, Yang W, Zhao S, Jiang M, Xu M, Liu F, Wang Y. Altered gut microbiota and microbial biomarkers associated with chronic kidney disease. Microbiologyopen. 2019 Apr;8(4):e00678. doi: 10.1002/mbo3.678. Epub 2018 Aug 7. PMID: 30088332; PMCID: PMC6460263.