-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
AI+微生物海量数据
人体肠道栖息着数以万亿计的微生物,它们携带的基因总数远超人类自身。这些微生物参与食物成分的分解与代谢,调节免疫功能,通过“肠-脑轴”与大脑对话,甚至影响功能性补充剂或药物在体内的代谢过程、作用效果与不良反应风险,是连接饮食、营养干预与人体健康的重要纽带。
然而长期以来,这座信息“金矿”始终难以被真正开采:测序技术让我们能够读出海量数据,却难以读懂它们——高维、稀疏、成分性、个体差异巨大,使得传统统计甚至机器学习等方法在这些数据面前越来越显得力不从心和巨大局限性。
例如,样本采集与测序流程缺乏统一标准造成的批次效应、不同人群与地域之间的显著异质性、模型“黑箱”带来的可解释性难题、一个在单一队列上表现出色的模型,换到另一个人群中往往会明显失效;一个预测准确的算法,如果不能给出生物学上合理的解释,也难以获得临床医生的信任。
人工智能(AI) 的到来正在改写这一局面。从随机森林到深度神经网络,再到借鉴大语言模型思路、学习微生物“语言”的基础模型,AI 首次让我们有能力在百万量级的数据中捕捉菌群、代谢与宿主之间复杂的非线性关联,把“哪些菌多了、哪些菌少了”的描述,升级为:
未来面临什么风险、原因何在、如何干预?
哪些微生物及其代谢产物,亦或蛋白层面真正驱动了疾病的发生与发展?
它们通过怎样的分子通路与宿主免疫、代谢和神经系统对话?
能否针对个体的菌群特征,设计精准的饮食、益生菌或粪菌移植干预方案?
本文以《Cell Systems》(2026) 的权威综述为主线,结合《Gut》、《Current Research in Biotechnology》与微生物组-AI 疾病预测系统综述的最新证据,回答业界最关心的五个问题:
肠道微生物组数据难在哪里?
分析方法如何从传统统计演进到基础模型?
AI 取得突破需要跨过哪些数据门槛?
它能否输出多组学、可解释的指标?
全球研究与检测正如何应用 AI?
肠道微生物组下一个十年的竞争,不在测序成本,而在数据规模、数据质量与 AI 能力的综合较量。谷禾健康依托数百万例规模、在统一标准下积累的微生物组、代谢组、蛋白组与膳食调查配对数据,已跨过构建微生物组 AI 基础模型的“平台级”门槛。
肠道菌群检测正从一份“菌群清单”,跃迁为可预测、可解释、可干预的健康决策书,成为连接个人健康管理、临床医学、精准营养与新药研发的关键基础设施。
肠道微生物组被称为人体的”第二基因组”。大量研究已证实,肠道菌群失衡与炎症性肠病、结直肠癌、2型糖尿病、肥胖、代谢相关脂肪性肝病、慢性肾脏病、心血管疾病、自身免疫病乃至抑郁、自闭症、帕金森病等神经精神各类疾病密切相关。
然而,从“关联”走向”应用”始终面临一道鸿沟。《Current Research in Biotechnology》的综述明确指出,肠道菌群数据通常呈现噪声大、稀疏、高维、成分性复杂和异质性强的特征。
而多数 AI 算法恰恰”渴求大量干净且统一的数据”;来自不同来源、平台和方法的数据会引入偏倚与混杂变量。而即使宏基因组数据的成分性、高维性和稀疏性,叠加微生物组研究普遍样本量偏小的现实,加剧了维度bug,限制了传统统计方法的有效性。
换言之,肠道微生物组领域真正的瓶颈,已不再是能否测得出来,而是”能否算得明白、用得上”。这正是 AI 介入的根本逻辑,也是具备大规模、标准化、多组学数据积累的机构在这一轮产业变革中占据先机的根本原因。
人工智能在微生物学中的八大应用潜力方向
Cell Systems 17, February 18, 2026
物种分类谱分析(Taxonomic profiling)
功能注释与预测(Functional annotation & prediction)
微生物组-X 互作(Microbiome-X interactions)
微生物生态(Microbial ecology)
代谢建模(Metabolic modeling)
精准营养(Precision nutrition)
临床微生物学(Clinical microbiology)
预防与治疗(Prevention & Therapeutics)
主流检测技术与数据形态
目前肠道微生物组检测主要依托以下几类技术:
编辑
数据的五大本质特征
1)高维性(High dimensionality)
一份宏基因组样本可产生数千个物种、数百万个基因特征,而单个研究的样本量常仅数十到数百例,”特征数远大于样本数“(p ≫ n)是常态。
2)稀疏性(Sparsity)
丰度表中大量为零值,其中既有真实缺失,也有测序深度不足造成的技术性零值,二者难以区分。
3)成分性(Compositionality)
测序得到的是相对丰度,总和受限于测序深度,一个菌的”增加”可能仅是其他菌减少的数学结果,直接套用常规相关分析易产生伪相关。
4)异质性与批次效应
地域、饮食、年龄、用药(尤其抗生素、PPI、二甲双胍)、取样方式、DNA 提取试剂盒、测序平台均会显著影响结果。《Gut》综述将”批次效应“与”区域效应“列为数据预处理的首要问题。
5)动态性与个体特异性
肠道菌群随饮食、昼夜节律、疾病进程持续变化,横断面数据目前还难以支持因果推断。
编辑
这五大特征共同决定了:肠道微生物组数据的价值释放,高度依赖大样本、标准化流程与能够处理非线性、高维、多模态数据的算法。
编辑
doi:10.1136/gutjnl-2025-335946
第一阶段:传统统计与生物信息学(描述与差异)
早期分析以 α/β 多样性、PCA/PCoA 降维、层次聚类、差异丰度检验(如 LEfSe、DESeq2、ANCOM)和相关网络为核心。
这类方法的优点是透明、机制可解释、适合假设检验,Gut 综述也承认,在需要机制透明度或假设检验的场景中,传统方法依然具有价值。
其局限在于:多为单变量或线性假设;难以捕捉菌-菌、菌-宿主间的非线性与高阶互作;多重检验校正后统计功效显著下降;难以整合多组学。
第二阶段:经典机器学习(预测与特征筛选)
以随机森林(RF)、支持向量机(SVM)、LASSO/弹性网络回归、逻辑回归、XGBoost 为代表的监督学习方法被广泛用于:
疾病分类:区分 CRC 患者与无瘤人群、IBD 亚型、膜性肾病与微小病变肾病等;
结局预测:预测 2 型糖尿病与前驱糖尿病、肿瘤免疫治疗应答、胰岛素抵抗人群的脂肪肝风险、粪菌移植(FMT)疗效;
个体化代谢反应:基于菌群特征预测餐后甘油三酯上升、血糖曲线下面积和 C 肽水平。
Current Research in Biotechnology 的汇总表显示,随机森林是目前应用最广泛的方法之一,可提升分析速度、筛选特征并评估其质量。同时,无监督学习(聚类、降维)被用于菌群分型(如”肠型”)和人群分层。
经典机器学习的局限同样明确:对特征工程依赖较重;在小样本上易过拟合;对早期病变(如早期 CRC)敏感度不足;跨队列泛化能力有限。
第三阶段:深度学习(表征学习与非线性建模)
深度学习的核心进步在于从“人工设计特征”转向“自动学习表征”:
自编码器家族(浅层/深层自编码器、变分自编码器 VAE、卷积自编码器):利用这些方法获得稳健的低维嵌入后,可在五个数据集上实现精确的疾病预测,并优于传统方法;
卷积神经网络(CNN):将菌群数据按系统发育树结构映射为“图像”,利用分类学层级信息;
循环神经网络(RNN)/长短期记忆网络(LSTM):处理纵向时间序列数据,捕捉菌群动态模式;
图神经网络(GNN):建模微生物共现网络与菌-代谢物-宿主相互作用网络;
注意力机制与 Transformer:在特征间建立长程依赖,同时提供天然的“注意力权重”解释。
第四阶段:预训练语言模型与基础模型(通用表征与迁移)
从 2000 年前的 One-Hot、TF-IDF 稀疏编码,到 2013-2014 年的 Word2Vec、GloVe 静态稠密嵌入,再到 2018 年后 ELMo、BERT 等上下文嵌入。
这一思想正被全面移植到微生物组:
将“物种”或“基因”视为“词”,将“样本”视为“句子”,通过大规模预训练学习微生物语言;
蛋白质语言模型用于微生物组蛋白空间的免比对分析(alignment-free);
基于大规模预训练的模型在下游小样本任务上通过迁移学习(transfer learning)实现高效微调。
《Gut》综述在结论中明确指出:“迁移学习和基于语言的预训练有望使 AI 模型更具数据效率、更具生物学根基”。这意味着,谁拥有足够大、足够多样、足够标准化的预训练数据,谁就具备了构建微生物组基础模型的关键先决条件。
基于人工智能的微生物组数据分析工作流
编辑
Zhou T, Zhao F. Gut 2026;75:1432–1446.
方法演进对照
编辑
必要条件
那么,AI 在肠道微生物组领域取得可靠进展需要同时满足以下条件:
1)足量且具代表性的数据
Current Research in Biotechnology 明确指出:“构建可靠输出的稳健机器学习(ML)框架,充足的数据集和强大的算力都是先决条件”。深度学习的主要障碍正是“标注数据稀少”以及“训练数据与真实样本(如临床数据)之间的显著差异”。
2)标准化的全流程质量控制
从采样、保存、提取、建库、测序到生信分析的一致性,直接决定数据能否被合并训练。Gut 综述将“不一致的预处理和缺乏标准化基准”列为可重复性下降的主因。
3)高质量的表型标注
监督学习的上限由标签质量决定。缺乏临床诊断、生化指标、饮食与用药记录的菌群数据,其建模价值大打折扣。研究亦提到,饮食作为重要混杂因素常被忽视。
4)独立队列验证
需要在不同地域、人群、时间的独立数据上验证,采用分层交叉验证应对类别不平衡,避免过于乐观的性能评估。
5)多组学配对数据
仅有物种丰度难以回答为什么,需要代谢组、蛋白组等功能层数据支撑机制解释。
6)算力与算法工程能力
包括超参数优化、正则化、早停、数据增强等防过拟合策略。
数据规模的“三级门槛”
基于现有研究和产业领域实践,可将 AI 应用的数据规模大致划分为三个层级:
◆ 研究级(10²~10³ 样本)
适合经典机器学习(ML)的探索性分类与标志物初筛,但过拟合风险高,结论常难以复现。系统综述和 Current Research in Biotechnology 汇总的大量研究均将“样本量小”列为首要局限。
◆ 转化级(10⁴~10⁵ 样本)
可支撑深度学习模型、跨人群泛化验证、疾病亚型分层,以及较稳健的人群参考区间构建。
◆ 平台级(10⁶ 样本及以上,且含多组学配对)
可支撑微生物组基础模型预训练、罕见表型挖掘、个体化纵向轨迹建模,形成难以复制的数据网络效应。
全球范围内,达到平台级、且兼具标准化流程与多组学配对的数据资源极为稀缺。这正是行业真正的门槛所在。
AI 相对于传统方法与经典机器学习的优势
1)捕捉非线性与高阶互作
AI 能够“捕捉非线性关系、整合多样化数据模态,揭示原本可能被隐藏的细微生物学模式”。菌群生态本身就是一个充满促进与抑制关系的复杂网络(微生物生态模块),线性模型天然难以刻画。
2)端到端表征学习,减少人为偏倚
深度模型自动从原始数据学习特征,降低对研究者先验的依赖。
3)原生的多模态融合能力
可在统一框架内融合菌群、代谢物、蛋白、临床与饮食数据。
4)时间序列与动态建模
RNN/LSTM/Transformer 可对纵向数据建模,实现趋势预警,而非单点快照。
5)规模效应与迁移学习
数据越多模型越强,预训练模型可迁移至小样本疾病,解决罕见病、新适应症样本不足的难题。
6)从预测走向设计
生成式 AI 已被用于抗菌肽设计、噬菌体-宿主匹配、益生菌筛选,实现从分析向创造的跃迁。
多组学整合的三种策略
Gut 综述将多组学整合归纳为三类:
直接数据合并:将不同组学特征拼接后统一建模;
间接数据合并:各组学先分别学习低维表征,再在隐空间融合;
模型融合:各组学独立建模后集成决策。
深度学习,尤其是多模态自编码器与图神经网络,使中间融合成为主流,能够显式建模“菌群-基因功能-代谢物-宿主蛋白-临床表型”的链条。
可解释 AI(XAI):打开黑箱
黑箱是 AI 进入临床的最大障碍之一。
Gut 综述指出,LIME、SHAP、DeepLIFT 和注意力机制等可解释 AI 技术“正被越来越多地采用,以增强可解释性,并使预测与生物学相关性保持一致”。
多尺度人工智能(AI)在微生物组数据挖掘中的应用
编辑
doi:10.1136/gutjnl-2025-335946
在实践层面,可解释 AI 能输出以下可落地的指标:
个体层面:每位受检者的风险评分由哪些菌、哪些代谢通路贡献,贡献方向与强度如何(SHAP 值);
人群层面:全局最重要的特征排序与交互效应;
机制层面:结合代谢建模,将关键菌映射到具体酶基因(如cutC/D)与代谢产物(如 TMA/TMAO);
干预层面:模拟改变饮食或补充特定菌株后,风险评分的预期变化(反事实解释)。
AI 不仅可以输出多组学指标,还能输出具有生物学含义、可被临床与用户理解的解释性因素——前提是模型设计时即以可解释性为目标,并以多组学数据作为机制锚点。
应用方向
1)物种分类谱分析
深度学习模型直接从测序读段中进行物种分类,提升低丰度物种与未培养微生物的识别能力,将序列信息(ATCG)转化为精确的群落组成图谱。
2)功能注释与预测
对质粒、生物合成基因簇(BGCs)、抗生素耐药基因(如万古霉素、大环内酯类耐药基因)以及病毒突变进行识别与功能预测。蛋白语言模型大幅扩展了“暗物质”蛋白的功能注释。
3)微生物组-X 互作
建模微生物组与宿主、药物、疾病之间的三角关系:预测药物被肠道菌代谢的可能性、菌群对药效与毒性的影响,以及菌群特征与疾病的关联。
4)微生物生态
推断微生物间促进与抑制的相互作用网络,预测群落稳定性与扰动后的恢复轨迹。
5)代谢建模
结合基因组尺度代谢模型(GEMs)与 AI,预测小分子代谢转化路径及代谢网络的补全(gap-filling)。
6)精准营养
整合宿主基因、菌群、代谢物(如短链脂肪酸)与生活方式数据,预测个体对食物的代谢反应,给出个性化膳食建议。
7)临床微生物学
从人体样本到病原识别、耐药预测再到临床诊断报告的全流程智能化。
8)预防与治疗
AI 辅助设计益生菌、噬菌体、抗生素、抗菌肽乃至疫苗,是当前最具突破性的前沿之一。
AI+ 大数据微生物组的应用潜力
编辑
Zhou T, Zhao F. Gut 2026;75:1432–1446
疾病预测:系统性证据
一项聚焦微生物组与 AI 疾病预测的系统综述比较了传统机器学习(ML)与深度学习(DL)方法,指出 AI 在识别疾病特异性微生物组模式、提高诊断准确性方面展现出应用潜力,涉及神经系统疾病、心血管疾病等多类慢性疾病。同时,该综述强调,现有研究的方法学异质性较高,亟需建立标准化分析流程,以提高研究结果的可比性与可重复性,推动临床转化。
谷禾健康利用 AI 构建的疾病预测模型,在检出率和敏感性方面在已验证的疾病预测任务中优于既往模型。尽管模型在不同疾病和人群中的适用性与泛化能力仍需持续验证,但这一进展标志着谷禾健康突破传统特征筛选与建模方法的局限,推动疾病预测从依赖有限标志物向整合多维菌群信息升级,为提升早期风险识别与精细化风险分层能力提供新的技术支撑。
Current Research in Biotechnology 的综述则以表格形式汇总了 AI 在 IBD、CRC、T2D、脂肪肝、肾病、移植物抗宿主病等领域的应用,并坦率列出小样本、未控制饮食混杂等局限。
全球趋势小结
综合来看,全球 AI-微生物组研究呈现四大趋势:
1)从微生物组学 + 代谢组的多组学升级;
2)从单一队列向多中心、跨地域数据联合建模,联邦学习成为在保护隐私前提下实现大规模协作的重要方案;
3)从预测模型向可解释、可干预模型演进;
4)从通用模型向基于预训练的领域基础模型发展。
共同的底层约束始终是:大规模、标准化、带高质量表型的多组学数据。
为什么是肠道-肝胆-肾脏轴?
人类代谢组数据库已收录超过 20 万种化合物;这些内源性与外源性代谢物或原样存在,或经人体酶代谢,或经宿主常驻细菌的酶代谢。肠道菌群产生前体物质,经门静脉进入肝脏进行转化(氧化、结合),最终由肾脏排泄——这是一条天然的“多器官-多组学”链条。
任何一个环节的异常,都会在循环代谢物谱上留下可测量的“指纹”。
IJMS(Mashima & Ishige, 2026)的综述还提出了一个对检测行业极具启发的观点:常规临床生化要求空腹采样,正是为了尽量减少饮食输入及其后续宿主与微生物代谢的影响;而现有技术已能检测纳摩尔级的外源性生物标志物。这意味着,饮食、菌群与宿主代谢的交互本身就是信息,而非噪声——只有同时掌握饮食、菌群和代谢数据,才能把“干扰”转化为“信号”。
关键疾病与生物标志物
1)代谢相关脂肪性肝病(MASLD/MASH)
MASLD 已成为全球最常见的慢性肝病,且越来越多患者进展为肝硬化和肝细胞癌。其进展涉及多条通路,其中“肠道菌群—胆汁酸—法尼醇 X 受体(FXR)轴”起关键作用。
甘氨鹅脱氧胆酸(glycochenodeoxycholate)由肝脏 CYP27A1、CYP8B1 等酶生成,又可被肠道菌酶去甘氨酸化,形成肝-肠往返;代谢相关脂肪性肝病患者血浆中该物质蓄积已有报道。菌群调节单独或联合 GLP-1 类药物改善病情的研究也在开展。
2)慢性肾病(CKD)
在 CKD 中,所有已报道的疾病相关生物标志物均由专性厌氧菌产生,其浓度通常在进食后 6~8 小时升高,并随疾病严重程度增加。
典型代表:
氧化三甲胺(TMAO):饮食中肉、蛋、奶来源的胆碱、左旋肉碱和甜菜碱,经厚壁菌门、变形菌门、放线菌门中 cutC/D 基因编码的胆碱-TMA 裂解酶转化为三甲胺(TMA),经门静脉入肝,被黄素单加氧酶 3(FMO3)氧化为 TMAO,再经肾脏排泄。慢性肾病排泄受阻,TMAO 蓄积可引发肾纤维化、炎症和动脉粥样硬化,已被归为尿毒症毒素。
苯乙酰谷氨酰胺(PAGln):同为肠道菌群-宿主共代谢产物,与心血管疾病及慢性肾病患者的认知障碍相关。
此外,吲哚硫酸盐、对甲酚硫酸盐等经芳香烃受体(AhR)等机制影响肾脏疾病进程。
3)药物性肝损伤(DILI)
研究指出,miRNA-122、HMGB1、角蛋白 18、谷氨酸脱氢酶等候选标志物特异性均偏低,目前尚无确立的 DILI 特异性生物标志物。这恰恰是 AI 多组学组合标志物策略的用武之地。
4)新生儿筛查中的菌群干扰
以异戊酸血症为例,亮氨酸除在人体线粒体中代谢外,还可被梭菌属、拟杆菌属、消化链球菌属、丙酸杆菌属等肠道菌的抗生素敏感酶代谢;新生儿接受抗生素治疗可能导致筛查假阳性。这说明不了解菌群状态,就无法准确解读代谢标志物。
AI 多组学的应用
现阶段,新提出的生物标志物在尚未完成验证时,往往以“标志物组合(panel)”形式使用。这与 AI 多特征建模的思路高度契合:单一代谢物易受饮食、菌群、肝肾功能多重影响,特异性有限;而将“膳食摄入—产毒菌丰度及功能基因—血/尿/粪代谢物—肝肾功能指标”纳入统一 AI 模型,才能区分吃进去的多、菌产得多、肝转化得多还是肾排得少,从而给出有指导意义的判断。
数据规模:跨越“平台级”门槛
如前所述,AI 在微生物组领域的核心约束是数据规模、标准化和表型质量。谷禾健康长期深耕肠道菌群检测,已积累百万例规模的肠道微生物组数据,并配套代谢组、蛋白组、膳食调查及健康问卷等多维数据。
这一规模使谷禾处于全球少数具备构建微生物组基础模型条件的机构之列:
足以支撑预训练
百万级样本可用于学习中国人群肠道微生物”语言”的通用表征,再迁移至具体疾病、具体场景。
足以覆盖长尾
罕见菌、罕见表型、特殊人群(婴幼儿、老年人、孕产妇、慢病人群)在大样本中才有足够的统计支撑。
足以构建人群参考
基于大规模健康与亚健康人群,建立按年龄、性别、地域、饮食分层的菌群参考区间,使”偏离正常”有据可依。
编辑
数据质量:标准化是模型可泛化的前提
多篇研究都在反复强调,批次效应和预处理不一致是可重复性的最大敌人。多中心、跨研究拼凑的公共数据往往难以避免这一问题。
同一机构在统一的采样、提取、建库、测序与生信流程下积累的数据,天然具备更低的技术噪声,更适合直接用于大模型训练,从源头保障模型的稳健性与泛化能力。
数据维度:多组学配对打通”菌-代谢-宿主”链
谷禾数据的独特价值在于多组学的配对:
微生物组:回答”有哪些菌、有多少、具备哪些功能基因“;
代谢组:回答”菌群实际产生了什么“,如短链脂肪酸、胆汁酸、TMAO、吲哚类、苯乙酰谷氨酰胺等;
蛋白组:回答”宿主做出了什么反应“,如炎症、屏障、代谢相关蛋白;
膳食调查:回答“输入是什么”,将 IJMS 综述强调的”饮食影响”从混杂因素转化为可建模变量;
健康问卷与临床信息:提供监督学习所需的表型标签。
这正是 Gut 与 Cell Systems 综述所指出的多组学整合方向的实际落地,也是肠-脑-肝胆-肾轴类复杂问题得以被准确解析的前提。
AI 与多组学的结合,将使肠道菌群检测报告发生本质性升级。
从描述到预测
传统报告告诉受检者”某菌偏高、多样性偏低”;基于大数据、AI的下一代肠道菌群报告将告诉受检者:基于你的菌群、代谢与饮食特征,你在代谢、肝脏、肾脏、心血管、肠道健康等维度的风险处于同龄人群的什么位置,未来趋势如何。
编辑
从单点到系统
以肠-脑-肝胆-肾轴为例,报告可整合产 TMA 菌丰度及 cutC/D 功能潜力、胆汁酸代谢菌群、相关代谢物水平与饮食结构,给出“代谢毒素负荷”的系统评估,并指出主要来源于饮食、菌群还是宿主代谢环节。
从结论到解释
每一项风险评分都附带可解释的贡献因素:
哪些菌、哪些代谢物;
哪些饮食习惯在推高或降低风险。
从报告到干预
基于个体特征的精准营养建议(如调整红肉、蛋黄等胆碱来源摄入,增加膳食纤维以促进短链脂肪酸产生),个性化益生菌/益生元选择,以及干预后的复测对比与轨迹追踪,形成 检测—解读—干预—复测的闭环。
从个人到产业
对医疗机构,提供辅助筛查与分层管理工具;
对药企与食品企业,提供菌群-药物互作、功能菌株筛选与临床试验人群分层支持;
对科研机构,提供高质量真实世界数据与分析平台。
如今,我们应当清醒地看到,建立社区级基准与标注数据集,推动微生物学家、数据科学家、临床医生与伦理学家的跨学科协作,开发可解释、可泛化、资源高效的模型——同样是产业界的行动纲领。
肠道微生物组的下一个十年,竞争的焦点不再是测序成本,而是数据规模、数据质量与 AI 能力的综合较量。
人工智能是这一转型的引擎,而大规模、标准化、多组学配对的数据则是引擎的燃料。上万篇的研究清楚表明,只有将饮食、菌群、代谢与宿主表型置于同一分析框架,才能真正读懂人体代谢的全貌。
主要参考文献
Cell Systems (2026). Artificial intelligence in microbiology and microbiome research: foundations, applications and challenges. PII: S2405-4712(26)00013-X.
Zhou T, Zhao F. Artificial intelligence in microbiome research. Gut 2026; 75: 1432–1446. doi:10.1136/gutjnl-2025-335946.
Mashima R, Ishige N. Role of the Gut–Liver–Kidney Axis in Disease Manifestation and Biomarker Alterations. Int. J. Mol. Sci. 2026; 27: 8201. doi:10.3390/ijms27188201.
Application of artificial intelligence in gut microbiota analysis and intervention. Current Research in Biotechnology 2024; 7: 100211.
Microbiome and artificial intelligence in disease prediction: a systematic review. (S2590-0056(26)00233-X), 2026.
谷禾健康
骨关节炎
骨关节炎常被形容为关节“用久了、磨坏了”。但如果它只是软骨被动磨损,就很难解释:
为什么同龄人的关节状况差异明显?
为什么影像上的损伤程度与疼痛并不总是一致?
肥胖带来的影响,又是否仅仅来自额外的关节负重?
这些问题提示我们,骨关节炎并非单纯的软骨退化,而是涉及软骨、滑膜、骨和免疫代谢环境的全关节疾病。近年来,一条看似离膝关节很远的线索受到关注:肠道菌群。菌群及其代谢产物能够影响肠道屏障、全身代谢和免疫炎症状态,进而可能参与关节疼痛与组织变化。
从链球菌属、Roseburia、脱硫弧菌等菌群的关联研究,到“菌-代谢物-关节”通路的探索,肠道菌群与骨关节炎之间的联系正变得更具体和可参考。
本文将梳理肠道菌群、微生物代谢物与骨关节炎之间的研究进展,并讨论饮食、运动、体重管理和微生态调节可能带来的启示。
本文目录
01 认识骨关节炎
骨关节炎通常是什么感觉? 哪些人更容易发生骨关节炎? 为什么不能只用“磨损”,来解释骨关节炎?
02 从肠道菌群失衡到关节损伤:肠-关节轴如何运作?
骨关节炎患者的肠道菌群发生了什么变化
肠道屏障受损:肠道里炎症信号如何进入循环?
菌群代谢物:进入全身循环的化学信号
免疫系统:菌群信号如何放大炎症
关节组织:炎症最终作用在哪里?
疼痛:为什么“片子不严重,却很疼”?
细菌细胞外囊泡:正被关注的新型信号载体
03 骨关节炎与全身健康——不只是关节的问题
肥胖与代谢综合征:不仅是膝盖承受得更多
糖尿病:高血糖也会影响关节
衰老与肌少症:年龄增加的不只是关节磨损
睡眠、压力、焦虑、抑郁:越疼越睡不好
肝脏和肾脏:远离关节,也参与代谢网络
口腔健康:牙周炎也可能和骨关节炎有关?
04 骨关节炎的相关干预措施
饮食 | 益生菌 | 益生元| 天然活性物质 |
后生元和菌群代谢物 | FMT |
下一代微生态治疗 | 运动 | 睡眠和压力管理
05 结语
骨关节炎是最常见的慢性关节疾病之一,也是导致中老年人关节疼痛、活动受限和生活质量下降的重要原因。
2020年全球疾病负担相关数据估计,全球约有5.95亿人受到骨关节炎影响,约占全球人口的7.6%。
骨关节炎可以发生在多个关节,其中以膝、髋、手部关节较为常见。
编辑
骨关节炎通常是什么感觉?
疼痛,是骨关节炎最常见也最困扰患者的症状。
–有些人平时感觉不明显,一走多了就疼。
逛街时间长一点、出去旅行走一天,或者连续做了一些家务,膝盖开始酸痛,休息后又会缓解一些。
–有些人的痛主要出现在上下楼、蹲起或从椅子上站起来的时候。
平地走路还可以,但一遇到需要屈膝和发力的动作,关节就开始不舒服。
–有些人最明显的感觉不是疼,而是关节发紧、不灵活。
比如坐久以后站起来,最开始几步感觉膝盖有些僵,需要活动一会儿才能逐渐顺畅。
随着疾病进展,症状可能从偶尔出现逐渐变得频繁。原本只是走远路不舒服,后来可能变成上下楼困难、蹲不下去,甚至日常行走距离也开始受到限制。
部分人还会出现关节肿胀、发紧、活动时有摩擦感或响声。这也提示,骨关节炎是整个关节内部的结构和组织状态都可能受到影响。
不同关节受累时,日常感受也会有所不同。
如果是膝关节:影响行走、上下楼和蹲起;
如果是髋关节:影响走路和髋部活动;
如果是手部关节,则可能在拿东西、拧瓶盖、做精细动作时感觉疼痛或不方便。
哪些人更容易发生骨关节炎?
骨关节炎通常不是由某一个单独因素造成的。目前比较明确的相关因素包括年龄增长、既往关节损伤、肥胖、遗传易感性以及长期异常机械负荷等;炎症和代谢异常也越来越受到关注。
○ 年龄
年龄增长是骨关节炎最重要的风险背景之一。随年龄增加,软骨修复能力下降、细胞衰老及线粒体功能障碍增加,关节更易受损。
注:年龄增加的是风险,而不是一个必然结果。同样是六七十岁,有的人关节功能保持得很好,有的人则已经出现明显疼痛和活动障碍。
○ 性别与绝经状态
女性患骨关节炎的风险通常高于男性,尤其是膝和手骨关节炎;髋骨关节炎的男女差异较小。
○ 遗传与家族史
骨关节炎具有一定遗传倾向,髋、膝、手和脊柱骨关节炎均可有较高遗传度。与软骨、胶原和骨代谢相关的多个基因可能参与发病。
○ 既往关节损伤
曾经发生过明显的关节创伤,也会增加之后发生骨关节炎的风险。
尤其是膝关节受到损伤后,关节内部原有的结构和受力状态可能发生变化。随着时间推移,这种影响可能逐渐表现出来。
○ 长期异常负荷
关节需要承受负荷,但长期处于异常受力状态,同样可能增加关节组织损伤。
○ 肥胖
最容易理解的一点就是,体重增加意味着关节承受的机械负荷随之增加。
不过,近年来大量研究发现,肥胖常常同时伴随一些全身性的生物学变化(这一部分我们会在后面的章节单独展开)。
○ 遗传因素
即使年龄、体重和生活环境相似,不同人对关节损伤和退变的易感程度仍然可能不同。现有研究将遗传、年龄和环境因素的共同作用视为骨关节炎发生发展的重要背景。
○ 肠道菌群
部分骨关节炎危险因素本身也与肠道菌群变化有关。比如,肥胖、衰老、高脂低纤维饮食、代谢异常以及长期压力,都可能影响肠道菌群组成、肠屏障和微生物代谢功能。
这意味着,一些传统风险因素可能不仅通过机械负荷或局部损伤影响关节,也可能通过“肠道—代谢—免疫”这条路径参与骨关节炎。
注:这部分内容会在后面章节详细展开。
为什么不能只用磨损,来解释骨关节炎?
机械负荷和关节损伤是骨关节炎的重要因素,但关节并不是一块被动磨损的材料。随着疾病进展,变化会同时涉及软骨、滑膜、软骨下骨和关节周围组织。
当关节长期承受异常应力或受到损伤后,软骨细胞的代谢和修复能力会发生变化,细胞外基质的分解逐渐超过合成;同时,滑膜炎症和软骨下骨重塑又会进一步改变局部环境,使损伤持续放大。IL-1β、IL-6、TNF-α等炎症介质以及氧化应激,也会参与这一过程。
因此,骨关节炎是否持续进展,不仅取决于最初受到多大的机械损伤,也取决于关节长期处在什么样的炎症和代谢环境中。
近年来,研究者开始进一步关注一个可能影响这种环境的远端因素——肠道菌群。
肠道和膝关节相隔很远,一个负责消化吸收,一个负责支撑和运动,看起来似乎没有太大关系。
但随着研究深入,人们发现肠道中的大量微生物,会参与人体的营养代谢、免疫调节、肠道屏障维护,还能产生多种具有生物活性的代谢物。
目前所谓的“肠-关节轴”,更接近一个连续的生物学过程:肠道微生态改变以后,肠屏障、微生物代谢物和免疫调节随之变化,这些信号进入全身循环,再作用于滑膜、软骨、软骨下骨以及疼痛相关的神经系统。
骨关节炎患者的肠道菌群发生了什么变化
多项人体研究发现,骨关节炎患者与健康人之间存在菌群组成和功能上的差异。
Streptococcus:与关节疼痛和炎症相关
编辑
2019年一项发表在 Nature Communications 的人群研究分析了Rotterdam Study III中的 1,427名受试者,并结合独立队列进行验证。研究发现,肠道中链球菌属(Streptococcus)相对丰度越高,膝、髋关节骨关节炎患者的WOMAC疼痛评分越高,而这一关联与局部关节炎症有关。
这项研究的重要意义在于,它把肠道微生物特征与骨关节炎最直观的临床表现之一——关节疼痛联系了起来。
Bilophila、Desulfovibrio 增加, Roseburia 减少
编辑
2021年,发表在 Arthritis & Rheumatology 的研究一项基于1,388 名社区中老年人的研究进一步观察了症状性手骨关节炎与肠道菌群之间的关系。
与无症状手骨关节炎人群相比,症状性手骨关节炎患者肠道中Bilophila和Desulfovibrio相对丰度升高,而Roseburia降低。
其中,Roseburia是肠道中重要的产丁酸菌之一;而Bilophila、Desulfovibrio则常与胆汁酸环境、硫代谢以及炎症状态联系在一起。
在更高的分类层级上,还表现为Desulfovibrionaceae等增加、Lachnospiraceae减少,提示骨关节炎相关菌群变化可能同时涉及促炎环境和有益代谢功能的下降。
其中Roseburia是较典型的产丁酸菌,因此这种变化也提示,骨关节炎相关菌群失衡可能同时伴随短链脂肪酸等微生物功能的变化。
菌群变化还伴随着代谢功能改变
编辑
2023年发表在 EBioMedicine 的另一项研究则进一步把菌群组成与代谢功能结合起来分析。
发现队列共 1,359人,其中70人为症状性手骨关节炎;
宏基因组测序显示,骨关节炎人群中Bilophila wadsworthia、Hungatella hathewayi、Lactobacillus mucosae和Citrobacter koseri增加,Roseburia intestinalis、Bacteroides、Haemophilus属减少。
研究还发现,肠道微生物的色氨酸生物合成功能下降,同时血液中的吲哚类和犬尿氨酸相关代谢物也发生变化。
骨关节炎患者核心肠道菌群变化的临床试验总结
编辑
DOI: 10.3389/fendo.2026.1802845
综合这些较大规模的人群研究,可以看到一个值得关注的方向:骨关节炎伴随的肠道菌群变化,常涉及部分产短链脂肪酸菌减少,以及部分与炎症或条件致病特征相关的菌增加;与此同时,色氨酸等微生物代谢功能也可能发生改变。
值得继续追问的是:这些变化如何被转化成能够影响远端关节的生物学信号?
肠道屏障受损:肠道里炎症信号如何进入循环?
肠道菌群要影响远端关节,首先需要跨过一个非常重要的界面——肠道屏障。
紧密连接受损,肠道通透性升高
正常情况下,肠上皮细胞之间连接得很紧,ZO-1、Occludin、Claudins等紧密连接蛋白负责把这道边界守住。
菌群长期失衡时,这些连接可能变得松散,肠道通透性随之增加。原本应该被限制在肠腔里的细菌成分,就有机会进入血液循环。也就是常说的“肠漏”。
LPS:研究最多的细菌来源炎症信号之一
其中最受关注的是LPS(脂多糖),它主要来自革兰阴性菌的细胞外膜。
LPS进入循环后,可与LBP(脂多糖结合蛋白)、CD14等分子结合,并进一步激活 TLR4–MyD88–NF-κB 等先天免疫通路,同时促进 NLRP3炎症小体 活化。
编辑
doi.org/10.3390/pathogens15010062
这些信号最终可增加IL-1β、IL-6、TNF-α等炎症介质释放,使机体长期处在较低水平但持续存在的炎症环境中,也就是常说的慢性低度炎症。
对于骨关节炎来说,这一点尤其重要,因为肥胖、代谢综合征、衰老等常见骨关节炎危险因素,本身也经常伴随低度炎症。
骨关节炎人群中也发现了屏障异常的线索
骨关节炎患者血液和滑液中的LPS、LBP水平,与疼痛、结构损伤以及滑膜巨噬细胞活化有关;
在410名手骨关节炎患者组成的DIGICOD队列中,研究者还发现,LBP和Zonulin相关蛋白升高,提示部分患者的肠道屏障确实可能存在异常。
不过,细菌成分并不是肠道菌群影响宿主的唯一方式。事实上,大量微生物并不需要离开肠道,它们每天产生的各种代谢物,本身就能够进入循环并影响免疫和代谢系统。
短链脂肪酸、胆汁酸、色氨酸代谢物,接下来才是肠-关节轴里真正有意思的部分。
菌群代谢物:进入全身循环的化学信号
我们吃进去的食物,有一部分自己消化不了,只能交给肠道菌群继续加工。菌群一边吃,一边不断产生新的小分子,这些分子可以进入循环,参与免疫、代谢、神经调节甚至关节组织。菌群结构一旦改变,身体接收到的这套化学信号也会跟着变。
在骨关节炎研究里,目前最受关注的主要有三类:短链脂肪酸、胆汁酸、色氨酸代谢物。
短链脂肪酸:肠屏障、免疫平衡、软骨保护
前面提到的Roseburia、Faecalibacterium等菌之所以经常出现在骨关节炎研究里,一个重要原因就是它们参与产生短链脂肪酸(SCFAs),其中最常见的是乙酸、丙酸、丁酸。
这些小分子一头连着肠道,一头连着免疫系统。它们可以通过GPR41、GPR43、GPR109A 等受体传递信号,也可以通过抑制HDAC影响基因表达,因此既能帮助维持肠屏障,也会影响巨噬细胞和T细胞的状态。
骨关节炎研究中也出现了越来越直接的证据。
2026年一项动物和细胞研究,给骨关节炎大鼠补充丙酸后,发现疼痛、炎症和软骨损伤都有所减轻,肠屏障也得到改善;
在来源于人骨关节炎患者的软骨细胞中,丙酸还能够调节炎症和细胞外基质相关基因,增强自噬,并减少部分分解代谢和炎症性细胞死亡信号。
注:这类结果目前主要来自动物实验和细胞实验,还不能等同于“补充丙酸能够治疗人类骨关节炎”。它更重要的价值,是证明短链脂肪酸可能真正参与肠-关节轴的调节。
这提示,肠道菌群对关节的影响未必依赖细菌本身进入关节,菌群产生的代谢物和由此引发的免疫变化,就可能改变关节所处的微环境。
胆汁酸:菌群加工、参与免疫调节
胆汁酸最早被认识,是因为它能够帮助消化和吸收脂肪。
但进入肠道以后,初级胆汁酸还会被肠道菌群继续加工,生成一系列次级胆汁酸。
这些胆汁酸不仅参与消化,还可以通过FXR、TGR5等受体影响炎症、葡萄糖代谢、能量代谢以及GLP-1分泌。
因此,菌群结构变化也可能重新塑造胆汁酸谱。
菌群变化 → 胆汁酸组成改变 → 免疫细胞状态改变 → 关节炎症发生变化
2026年一项骨关节炎动物研究提供了一个很有代表性的例子。
研究发现,桑椹水提取物可以增加约氏乳杆菌(Lactobacillus johnsonii),这种菌又能促进HDCA生成,随后巨噬细胞极化发生改变,滑膜炎和软骨损伤减轻。
更进一步的菌株定植实验表明,单独给大鼠定植约氏乳杆菌,也能复制一部分效果。
注:HDCA(Hydroxy Desoxycholic Acid)是次级胆汁酸,由肠道微生物产生,参与脂肪消化和胆固醇代谢,实验显示,它能够影响巨噬细胞的炎症状态,减少促炎型巨噬细胞,并促进偏修复状态的巨噬细胞,从而减轻滑膜炎和软骨损伤。
编辑
doi.org/10.1016/j.phymed.2025.157679
色氨酸代谢:吲哚类物质、肠道屏障、免疫调节
色氨酸是我们从食物中获得的一种氨基酸,但进入肠道以后,它并不会只有一种去路。部分色氨酸会被肠道菌转化成吲哚及其衍生物,比如吲哚-3-丙酸(IPA)和吲哚-3-甲醛(IAld)。
菌群变化 – 代谢改变 – 宿主炎症
这些分子可以激活 AhR(芳香烃受体),进而影响肠屏障和免疫调节。在软骨细胞实验中,部分吲哚类代谢物能够抑制NF-κB相关炎症反应,同时减少基质降解酶,并维持聚集蛋白聚糖和Ⅱ型胶原等软骨成分。
前面那项2023年的大样本人群研究也发现,症状性手骨关节炎人群的菌群色氨酸生物合成功能下降,同时血浆中的多种色氨酸代谢物发生改变。
还有哪些代谢物值得关注?
其他菌群代谢物:GABA、硫化氢、TMAO等
部分研究正在关注GABA、硫化氢(H₂S)、TMAO、多胺以及尿石素等代谢物。
其中,动物和细胞实验提示,某些益生菌产生的 GABA可能具有软骨保护和抗炎作用;孟德尔随机化研究也发现,与微生物硫代谢和H₂S相关的部分代谢通路可能与骨关节炎风险有关。
注:这些研究目前的证据成熟度低于短链脂肪酸等领域,而且同一种代谢物的作用往往与产生部位、浓度和宿主状态有关。最好是看整个菌群代谢网络是否仍然处于稳定状态。
讲到这里,肠-关节轴其实已经走到了一个关键节点:无论是LPS、短链脂肪酸、胆汁酸还是色氨酸代谢物,最后都绕不开一个更核心的调节系统——免疫系统。
免疫系统:菌群信号如何放大炎症
LPS、短链脂肪酸、胆汁酸等微生物相关信号进入循环后,往往需要通过免疫系统,进一步影响关节局部的炎症状态。其中,巨噬细胞和T细胞是目前研究较多的两类免疫细胞。
巨噬细胞:炎症状态发生偏移
巨噬细胞广泛存在于滑膜等关节组织中,也是连接全身炎症与局部关节反应的重要细胞。
在实验研究中,LPS可通过 TLR4–NF-κB、NLRP3炎症小体等通路促进巨噬细胞释放IL-1β、IL-6、TNF-α等炎症因子,使其更偏向促炎状态;而丁酸等短链脂肪酸以及部分次级胆汁酸,则可能通过调节受体信号、表观遗传和细胞代谢,限制过度炎症反应。
编辑
研究中常用“M1型”和“M2型”描述巨噬细胞的促炎和修复倾向。虽然真实组织中的巨噬细胞状态远比这种二分法复杂,但在骨关节炎研究中,促炎型巨噬细胞增加、炎症消退和组织修复能力不足,被认为是滑膜炎持续存在的重要原因之一。
前面提到的HDCA就是一个例子。动物实验显示,肠道菌群产生的胆汁酸变化可以影响巨噬细胞极化,从而减轻滑膜炎和软骨损伤。这说明,菌群代谢变化与关节炎症之间,免疫细胞可能是重要的连接环节。
T细胞:Th17与Treg的平衡
T细胞同样参与骨关节炎相关炎症调节。其中研究较多的是 Th17细胞和调节性T细胞(Treg)。
Th17细胞可分泌IL-17等促炎因子,促进滑膜炎症和组织分解;Treg则通过IL-10等机制抑制过度免疫反应,帮助维持免疫耐受。肠道菌群及其代谢物能够影响这两类细胞的分化,因此菌群失衡有可能推动 Th17/Treg平衡向促炎方向偏移。
编辑
doi: 10.3389/fimmu.2023.1168818
2025年的一项孟德尔随机化研究进一步发现,部分肠道菌群与膝骨关节炎之间的关联,可能由特定CD4+ T细胞和活化Treg相关免疫特征介导。
注:这类结果仍需要更多研究验证,但它提示,菌群对骨关节炎的影响并不只停留在“炎症因子升高”这一层面,还可能涉及更具体的免疫细胞调节。
整体来看,肠道菌群更像是在改变机体的免疫背景:当促炎信号持续存在,而炎症消退和免疫调节能力下降时,原本局限于关节的损伤更容易被放大和维持。
关节组织:炎症最终作用在哪里?
经过肠屏障、循环和免疫系统之后,肠道来源的影响最终仍要落到关节本身。骨关节炎涉及的主要组织包括滑膜、关节软骨和软骨下骨,而且三者之间会相互影响。
滑膜:局部炎症的重要来源
骨关节炎并不是典型的自身免疫性关节炎,但不少患者同样存在不同程度的滑膜炎。
当滑膜中的巨噬细胞等免疫细胞被持续激活后,可释放IL-1β、IL-6、TNF-α等炎症介质,引起滑膜增厚、血管改变和炎症细胞浸润,并进一步加重疼痛和关节肿胀。
这些炎症因子还会作用于软骨细胞,因此滑膜炎并不只是一个伴随现象,而可能持续推动软骨退变。
软骨:合成减少,分解增加
正常情况下,软骨细胞负责维持Ⅱ型胶原和聚集蛋白聚糖等细胞外基质。骨关节炎发生后,这种平衡逐渐被打破。
炎症信号可促进 MMP-13、ADAMTS-5 等分解酶表达。其中,MMP-13主要参与Ⅱ型胶原降解,ADAMTS-5则可分解聚集蛋白聚糖。与此同时,氧化应激、线粒体功能异常和自噬障碍也会影响软骨细胞的生存和修复能力。
近年来,细胞焦亡、铁死亡等程序性细胞死亡机制也被纳入骨关节炎研究,但目前更多仍属于机制研究领域。
软骨下骨:异常重塑改变关节环境
软骨下骨并不是静止的支撑结构。骨关节炎过程中,它会经历持续的骨重塑,涉及破骨细胞、成骨细胞以及 RANK/RANKL/OPG、Wnt 等信号通路。
异常骨重塑不仅会改变骨密度和微结构,还会重新分配关节受到的机械应力,并通过血管、炎症因子和细胞信号继续影响上方软骨。
因此,肠-关节轴最终影响的并不是某一个单独组织,而是进入了骨关节炎本身已有的病理网络:滑膜炎症、软骨分解和软骨下骨重塑彼此促进,使关节逐渐失去原有稳态。
疼痛:为什么“片子不严重,却很疼”?
骨关节炎疼痛与影像学损伤并不总是完全一致。有的人X线改变明显,但疼痛并不突出;也有人影像学改变有限,却长期存在明显疼痛。原因之一,就是骨关节炎疼痛不仅取决于结构损伤,还受到神经系统敏感性的影响。
外周敏化:关节里的痛觉神经变得更敏感
软骨本身几乎没有神经,但滑膜、关节囊、韧带和软骨下骨都存在丰富的感觉神经。
当IL-1β、IL-6、TNF-α、NGF、PGE2等炎症和疼痛相关信号长期升高时,可降低感觉神经末梢的激活阈值,并影响 TRPV1、CGRP 等疼痛相关通路,使原本正常或轻微的刺激更容易被感知为疼痛,这被称为外周敏化。
因此,持续的滑膜炎和局部炎症不仅造成组织损伤,也会直接改变痛觉系统。
中枢敏化:疼痛系统本身发生改变
如果疼痛信号长期、反复进入脊髓和大脑,中枢神经系统也可能逐渐发生适应性改变。
脊髓小胶质细胞活化、p38/MAPK以及CX3CL1/CX3CR1等神经免疫通路,都被认为与骨关节炎慢性疼痛和中枢敏化有关。此时,即使关节局部刺激并没有同步加重,患者仍可能表现出疼痛阈值下降、疼痛范围扩大,甚至对轻微刺激产生明显不适。
肠道菌群可能通过全身炎症、微生物代谢物和神经免疫信号参与这一过程,但目前这部分证据仍以动物和机制研究为主,人体中的直接因果关系尚未完全建立。
这也解释了为什么骨关节炎疼痛不能只看软骨“磨损了多少”。结构损伤、炎症状态和神经敏化共同决定了一个人最终感受到的疼痛程度。
细菌细胞外囊泡:正被关注的新型信号载体
除了LPS和可溶性代谢物,近年来研究者还开始关注另一类微生物来源信号——细菌细胞外囊泡(bacterial extracellular vesicles,BEVs)。
细菌细胞外囊泡是什么?
细菌细胞外囊泡(BEVs) 是细菌释放的纳米级膜性小囊泡,通常由脂质膜包裹,其中可以携带蛋白质、脂质、核酸、代谢物,以及LPS、肽聚糖等细菌成分。
它们的重要特点在于:细菌本身不需要进入关节,部分细菌来源的分子仍可能通过囊泡被运输到远端组织。
编辑
DOI: 10.1080/19490976.2025.2489069
已有研究提示,部分BEVs能够跨越肠屏障进入循环,并影响免疫细胞、炎症通路和远端器官。因此,它们被认为可能是肠道菌群与宿主组织之间一种新的信息传递方式。
不同来源的BEVs,作用可能完全不同
BEVs并不是一种性质单一的物质。
来自革兰阴性菌的囊泡可能携带LPS等促炎成分,激活TLR4等先天免疫通路;
而某些共生菌或益生菌来源的BEVs,则可能具有调节屏障、免疫和代谢的作用。
编辑
DOI: 10.1080/19490976.2025.2489069
近年来,还有研究尝试利用工程化细菌囊泡进行药物或生物活性分子的靶向递送。
注:与LPS、短链脂肪酸等研究相比,BEVs在骨关节炎中的证据仍处于较早阶段。目前更适合把它看作一个值得关注的新机制,而不是已经得到临床证实的骨关节炎致病因素。
到这里,肠-关节轴的基本路径已经比较清楚:肠道菌群可以通过屏障功能、微生物代谢物和免疫调节,影响滑膜、软骨、软骨下骨以及疼痛相关通路。
但这些机制并不会在每个人身上以同样的方式出现。有人更突出的是肥胖和代谢异常,有人以滑膜炎症为主,也有人结构损伤并不严重,却表现出明显的疼痛敏化。也正因为如此,同样是骨关节炎,不同人的症状、进展速度和治疗反应往往差别很大。
在临床和人群研究中,骨关节炎经常与肥胖、糖尿病、心血管代谢异常、肌少症、睡眠障碍以及焦虑、抑郁等问题同时出现。它们有些共享年龄、体重和生活方式等风险因素,有些则可能通过慢性炎症、代谢异常和疼痛形成更复杂的相互影响。
肥胖与代谢综合征:不仅是膝盖承受得更多
|瘦素/脂肪因子;IL-6、TNF-α;胰岛素抵抗;丙酸、吲哚
肥胖与膝骨关节炎之间的关系最容易理解——体重越大,行走、上下楼时膝关节承受的机械负荷越高。
但有意思的是,肥胖与手骨关节炎同样存在关联。手指显然不会因为体重增加而多承受几十公斤重量,这提示肥胖对骨关节炎的影响还有机械负荷之外的部分。
脂肪组织本身具有活跃的内分泌和免疫功能。肥胖时,脂肪组织可释放更多IL-6、TNF-α、瘦素等信号,并伴随胰岛素抵抗、血脂异常和慢性低度炎症。
编辑
DOI 10.3389/fimmu.2026.1892592
瘦素等信号还可以作用于滑膜和软骨细胞,通过JAK/STAT、NF-κB等通路促进炎症和基质分解;游离脂肪酸和脂质代谢异常也可能增加氧化应激,进一步改变关节局部环境。
肠道菌群也可能参与其中。
一项针对肥胖并伴有手、膝骨关节炎人群的粪便代谢组研究发现,与肥胖但无骨关节炎的对照相比,骨关节炎组的丙酸水平降低,二肽和三肽增加,同时吲哚及其他色氨酸代谢物发生改变,并伴有氨基酸代谢、脂肪酸利用和白三烯代谢异常。
因此,高血压、腹型肥胖、高血糖和血脂异常聚集形成的代谢综合征,与骨关节炎之间的联系并不只是体重增加。对这部分患者来说,减重的意义也不仅是给膝盖减负,同时还可能改善全身代谢和炎症环境。
糖尿病:高血糖也会影响关节
|AGEs–RAGE;SCFA、色氨酸;胆汁酸–FXR/TGR5–GLP-1
糖尿病与骨关节炎经常出现在同一个人身上,一部分原因当然来自肥胖、年龄和运动不足等共同因素,但高血糖本身也可能影响关节组织。
长期血糖升高会促进晚期糖基化终产物(AGEs)形成。AGEs可在胶原等长寿命蛋白中积累,使组织弹性下降,并通过其受体RAGE促进氧化应激和炎症反应。与此同时,胰岛素抵抗和糖脂代谢紊乱也可能改变软骨细胞和滑膜细胞的代谢状态。
编辑
doi: 10.1017/erm.2024.7
肠道菌群可能进一步参与这种过程。代谢性骨关节炎研究特别关注短链脂肪酸、色氨酸代谢物以及胆汁酸—FXR/TGR5—GLP-1通路:这些微生物相关代谢信号既参与葡萄糖和脂质代谢,也会影响肠屏障、免疫和关节炎症。
反过来,骨关节炎带来的疼痛和活动减少,又可能使体重、血糖控制进一步恶化。所以在实际生活中,骨关节炎和糖尿病常常不是两个互不相关的问题,而可能形成“疼痛—少动—代谢变差—关节负担进一步增加”的循环。
衰老与肌少症:年龄增加的不只是关节磨损
|SASP、炎症、免疫衰老;Th17/Treg
骨关节炎随年龄增加而明显增多,但衰老带来的变化远不止软骨变薄。
随着年龄增长,软骨细胞的线粒体功能、自噬和修复能力逐渐下降;部分细胞进入衰老状态后,会持续释放IL-6、基质降解酶等炎症和分解信号,这类现象被称为 SASP(衰老相关分泌表型)。
与此同时,免疫系统也会出现免疫衰老(immunosenescence)和 炎症性衰老(inflammaging)。
现有研究提出,肠道菌群失衡和屏障功能下降可能持续提供低水平炎症刺激,进一步放大这种“代谢炎症-免疫衰老”状态,并影响Th17/Treg平衡和巨噬细胞功能。
编辑
很多老年人还存在肌少症(肌肉量和肌力下降)。股四头肌等关节周围肌肉力量不足,会降低关节稳定性,使行走和站立时的负荷分配更加不利;疼痛又会让人更少活动,进一步加快肌肉流失。
睡眠、压力、焦虑、抑郁:越疼越睡不好
|HPA轴;LPS–TLR4–NLRP3;IL-1β/TNF-α/IL-6
慢性骨关节炎患者中,睡眠问题非常常见。
疼痛可以让人难以入睡、夜间频繁醒来;而睡眠不足又会降低疼痛阈值,使第二天对疼痛更加敏感。时间一长,很容易形成“疼痛增加-睡眠变差-痛觉敏感-疼痛进一步增加” 的循环。
长期压力则可持续激活 HPA轴和交感神经系统,改变皮质醇和儿茶酚胺水平,并影响肠道运动、屏障功能和菌群组成。
在动物慢性应激模型中,还观察到 Alloprevotella增加,而Parasutterella、Parabacteroides等减少。这些结果还不能直接套用到骨关节炎患者身上,但说明心理压力确实可能伴随具体的微生态变化。
功能变化:压力导致肠屏障受损后,LPS入血增加,可进一步激活TLR4和NLRP3炎症小体,促进IL-1β、TNF-α、IL-6等炎症因子释放,并参与滑膜炎和疼痛敏化。
编辑
doi: 10.3389/fmicb.2026.1851267
焦虑和抑郁也有类似的双向关系。长期疼痛会影响情绪和生活质量,而持续的压力、焦虑和睡眠不足又可能通过神经、内分泌和免疫系统增强痛觉敏化。
慢性疼痛本身就是关节、免疫系统和神经系统共同参与的生理过程。也因此,有些人的影像学改变并不严重,却可能感受到非常明显的疼痛。
肝脏和肾脏:远离关节,也参与代谢网络
| C. bolteae–GUDCA–FXR–GLP-1;
| 吲哚硫酸、FGF23、维生素D、MMP-13/9
肝脏和肾脏虽然离关节很远,却决定着人体大量代谢物和炎症信号的水平。
肝脏首先连接着脂质、铁和胆汁酸代谢。
研究发现,骨关节炎患者肠道中Clostridium bolteae 相对丰度降低,并与血浆 GUDCA(甘氨熊去氧胆酸) 水平呈正相关;在小鼠实验中补充该菌,可提高UDCA/GUDCA相关胆汁酸和GLP-1水平,并减缓骨关节炎进展。
这说明肝脏产生的胆汁酸可能通过 菌群—胆汁酸—FXR/GLP-1等信号共同影响代谢和关节环境。
另一条值得关注的是铁代谢。肝脏调节的铁调素—铁输出蛋白轴(hepcidin–ferroportin)异常可能增加铁蓄积和脂质过氧化,而 GPX4 等抗氧化系统失衡又与软骨细胞铁死亡有关。不过,这部分目前仍主要属于机制和动物研究。
肾脏则与骨矿物质和尿毒素代谢密切相关。慢性肾病时,FGF23升高、维生素D代谢异常可能影响Wnt/β-catenin等通路,并促进MMP-13、MMP-9等软骨基质降解酶表达;另一方面,肠道菌群参与产生的吲哚硫酸等尿毒素无法及时清除,也会增加氧化应激和炎症。
注:目前肝肾疾病与骨关节炎之间的很多联系仍以相关性和机制研究为主。
口腔健康:牙周炎也可能和骨关节炎有关
|Bacteroidota、Fusobacteriota、LPS生物合成;MAPK11
除了肠道,口腔也是人体重要的微生态系统。
牙周炎是一种慢性炎症性疾病。牙周组织长期发炎时,局部细菌成分和炎症介质可能进入循环,增加全身炎症负荷;与此同时,大量口腔微生物还会随着吞咽进入胃肠道。
近年来,研究人员开始关注“口腔-肠道-关节轴”。
2026年的一项多组学病例对照研究同时分析了骨关节炎患者的口咽菌群、肠道菌群和软骨组织。
编辑
结果显示,骨关节炎组口腔中拟杆菌门和梭杆菌门等相对富集;肠道中观察到瘤胃球菌科(Ruminococcaceae)和Subdoligranulum 等增加。部分肠道微生物还与软骨中的炎症相关基因及细胞外基质重塑蛋白存在相关性。
此外,一些口腔致病菌也提供了机制线索。例如牙龈卟啉单胞菌(Porphyromonas gingivalis) 的成分可进入循环或影响肠道免疫环境;具核梭杆菌(Fusobacterium nucleatum) 产生的细胞外囊泡,也被研究发现能够影响肠道免疫稳态。这些结果为“口腔-肠道-关节轴”提供了一定的生物学依据。
注:这类研究目前样本量仍较小,而且主要属于横断面观察,因此说明口腔菌群和骨关节炎存在关联。它更重要的意义在于提醒我们:影响关节的微生态环境,可能并不只来自肠道。
目前证据最可靠的,仍然是饮食、减重、运动、睡眠和代谢管理;益生元、益生菌以及部分天然活性物已经积累了一定的人体或动物证据;而短链脂肪酸、胆汁酸、FMT、工程菌、噬菌体和细菌细胞外囊泡等,则更多处在机制验证和转化研究阶段。
饮食
最基础,也最容易长期影响菌群
如果要长期改变肠道菌群,饮食几乎是最需要考虑的因素。对大多数人来说,决定菌群每天吃什么的,是一日三餐。
饮食干预总体有效,限能量饮食证据明确
【随机试验Meta分析】
2025年一项系统综述和Meta分析进一步汇总了9项随机对照试验,共纳入898名骨关节炎患者,涉及限能量饮食、地中海饮食、低脂饮食、抗炎饮食、低碳水饮食和植物性饮食等多种模式。总体来看,饮食干预能够改善骨关节炎患者的疼痛和身体功能,并降低体重;其中证据最明确的是限能量饮食,在疼痛、功能和减重方面均表现出显著改善。
编辑
doi.org/10.3390/nu17111872
地中海饮食依从性高的人,疼痛更轻、功能更好
富含蔬菜、水果、全谷物、豆类、坚果、鱼类和橄榄油的地中海式饮食,长期以来被认为有利于心血管和代谢健康。
从肠道菌群角度看,这类饮食同时提供较丰富的膳食纤维、多酚和不饱和脂肪酸,因此也更有利于形成较多样的微生物代谢环境。
【观察性研究】
2026年一项横断面研究纳入了103名原发性膝骨关节炎患者,采用MEDAS评分评估地中海饮食依从性。结果发现,地中海饮食依从性越高,患者的疼痛程度越低,关节功能也越好;在校正部分临床和生活方式因素后,这种关联仍然存在。
饮食的影响可能还与其整体炎症潜力有关
【使用RCT的基线数据】
一项研究发表于2025年,分析了FEAST试验中 144名有症状膝骨关节炎患者的基线数据,用膳食炎症指数(DII)和能量校正后的E-DII评估饮食整体偏促炎还是抗炎。
结果发现,在男性患者中,饮食越偏促炎,能量/活力水平越低,而且校正年龄和BMI后仍存在关联。
少一点高脂、高糖和高度加工食品
长期高脂、高糖、低纤维的饮食模式,在动物和人体研究中都与菌群失衡、肠屏障异常和代谢性炎症有关。减少含糖饮料、精制碳水、反复油炸食品和高度加工食品,不仅是为了体重,也可能减少促炎代谢环境对关节的持续影响。
益生菌
有人体试验,但效果高度依赖菌株
益生菌可以通过竞争性抑制潜在致病菌、改善肠屏障、降低LPS负荷,并调节短链脂肪酸和免疫反应来影响骨关节炎。
人体试验:部分益生菌可改善疼痛和炎症指标
【随机试验Meta分析】
2026年一项Meta分析汇总了8项膝骨关节炎随机对照试验。总体来看,益生菌在VAS疼痛、WOMAC疼痛和僵硬以及血清CRP方面表现出一定改善,但身体功能结果并不完全一致,而且不同菌株、干预时间和患者基础炎症状态造成了较大的研究异质性。
其中比较有代表性的研究包括:
干酪乳杆菌代田株(Lactobacillus casei Shirota)
2017年一项双盲安慰剂对照试验纳入537名膝OA患者,持续6个月,益生菌组WOMAC、VAS疼痛和hs-CRP均优于安慰剂组。
多菌株益生菌
【随机对照试验】
2024年一项纳入147名膝OA患者的双盲试验,使用含 8株乳酸菌和双歧杆菌的Vivomix多菌株益生菌,持续12周。结果显示,益生菌组的行走时疼痛、WOMAC评分和OA严重程度下降,步行速度、握力和平衡能力改善;同时血浆 Zonulin和CRP降低,提示肠屏障通透性和全身炎症可能参与其中。
多菌株益生菌Vivomix (8 strains)包括:
Streptococcus thermophilus DSM 24731,
Bifidobacterium longumDSM 24736,
B. breve DSM 24732/24737,
Lactobacillus spp. DSM 24735/24730/24733,
L. delbrueckii subsp. bulgaricus DSM 24734
【动物实验+人软骨细胞】
研究发现,嗜热链球菌(Streptococcus thermophilus)和戊糖乳杆菌(Lactobacillus pentosus)处理后,小鼠体内GABA水平升高,关节软骨分解和炎症减轻;GABA在人骨关节炎软骨细胞中也表现出一定软骨保护作用。
谷禾搜索多篇相关文献,整理的一些与骨关节炎干预相关的证据较充分的益生菌如下:
编辑
益生元
改变菌群的“营养环境”
益生元是利用饮食底物,让原有菌群中的某些成员获得生长优势。常见的有菊粉、低聚果糖(FOS)、低聚半乳糖以及抗性淀粉等。
低聚果糖:增加双歧杆菌,炎症和软骨损伤减轻
【动物实验】
2018年的研究发现,高脂饮食肥胖小鼠中有益的双歧杆菌减少,而补充低聚果糖后,尤其是 Bifidobacterium pseudolongum明显增加。
与此同时,结肠炎症、循环炎症和滑膜巨噬细胞浸润下降,OA软骨损伤也明显减轻。
注:低聚果糖并没有明显降低这些小鼠的体重,提示它的保护作用不能完全用“减重”解释。
菊粉和低聚果糖:改善功能,影响丁酸和GLP-1
【随机对照试验】
2024年一项研究纳入54名同时患有肥胖和膝OA的成年人,每天补充16 g低聚果糖强化菊粉,持续6个月。与安慰剂相比,益生元组在起立行走、40米快速步行和握力等身体功能指标上表现更好,躯干脂肪量也下降;膝痛呈改善趋势。
【随机对照试验】
一项117名膝OA患者的试验中,每天补充 20g 菊粉6 周后,疼痛较安慰剂下降,同时压力痛阈和时间总和等疼痛敏化指标有所改善。研究还发现菊粉组的丁酸和GLP-1升高。
注意:高剂量可发酵纤维也容易造成腹胀、排气增多等问题,通常需要逐渐增加,而不是突然大量补充。
天然活性物质
可能先经过肠道,再到关节
姜黄素、白藜芦醇、维生素D等天然活性物质,过去更多是从抗炎、抗氧化角度讨论。
一个很有意思的问题:很多植物活性成分口服后的全身生物利用度并不高,大量成分反而会停留在肠道,并接受肠道菌群进一步代谢。因此,它们的部分作用可能首先发生在微生态层面。
编辑
DOI 10.3389/fimmu.2023.1323233
★姜黄素:保护软骨,减轻炎症并改善关节症状
姜黄素在动物研究中可改善肠屏障相关蛋白,并抑制 LPS–TLR4–MyD88–NF-κB 信号以及IL-1β、TNF-α等炎症因子。
【临床研究】
临床研究发现,姜黄素制剂可改善膝骨关节炎患者的疼痛和功能。尤其是一项为期 6周的研究显示,姜黄素纳米胶束可显著改善膝OA相关症状。
姜黄素治疗膝骨性关节炎:一系列临床干预措施
编辑
DOI 10.3389/fimmu.2023.1323233
★白藜芦醇:调节肠道菌群,减轻炎症反应
白藜芦醇则可能同时影响菌群、氧化应激和软骨细胞 Nrf2、NF-κB 等通路。
【动物实验】
研究发现,补充白藜芦醇可改变肠道菌群组成,增加Akkermansia、Ruminococcaceae等有益菌群,并改善肠屏障功能。与此同时,全身炎症、脂肪堆积和高脂饮食引起的肠道菌群失衡均有所减轻。
★辣椒素:缓解关节疼痛,抑制炎症反应
多项临床研究发现,局部外用或关节腔内给予辣椒素,可减轻骨关节炎相关疼痛。其镇痛作用主要与调节痛觉受体 TRPV1 有关,因此辣椒素被认为具有改善骨关节炎疼痛症状的潜力。
辣椒素除直接缓解疼痛外,还可能通过抑制炎症反应减轻骨关节炎相关症状。
【细胞与动物研究】
实验研究显示,辣椒素可下调 COX-2、NF-κB等炎症相关信号,并减少 TNF-α、IL-1β和IL-6 等促炎因子的表达;动物实验中,辣椒素制剂也表现出一定的抗炎和镇痛作用。
★桑葚水提物:提高次级胆汁酸,减轻滑膜炎
我们前面章节已经讲过,一项研究发现,桑葚水提物可选择性增加约氏乳杆菌,进而提高次级胆汁酸 HDCA。
HDCA可以抑制促炎型巨噬细胞状态、促进偏修复型巨噬细胞,从而减轻滑膜炎和软骨退变。
★维生素D:缺乏与OA严重程度相关,补充改善
较低的维生素D水平与更严重的膝骨关节炎症状和结构异常相关。
【临床观察】
2025年的一项研究纳入 171名40–75岁的膝骨关节炎患者,其中63.7%的患者维生素D水平低于30 ng/mL。与维生素D水平正常者相比,维生素D不足或缺乏患者的VAS疼痛评分和WOMAC评分更高、KOOS评分更差,同时更常出现滑膜炎、软骨厚度减少及骨炎等表现。
研究显示,部分研究观察到维生素D补充对膝OA患者具有一定的症状改善作用。
【维生素D2】
例如,一项纳入 175名维生素D不足的膝OA患者的研究中,每周补充40,000 IU维生素D2、持续6个月后,患者的VAS疼痛评分、生活质量和多项身体活动能力均得到改善。
【维生素D3】
维生素D3可能通过调节炎症反应改善OA症状。
一项纳入80名膝骨关节炎患者的研究中,每日补充 4000 IU维生素D3、持续3个月 后,患者的VAS疼痛评分及WOMAC疼痛、僵硬和功能评分均显著改善,同时部分促炎因子水平下降。
维生素D3长期随机对照研究结果并不一致。
一项纳入413名患者、持续2年的研究发现,每月补充 50,000 IU维生素D3 虽显著提高血清维生素D水平,但未显著改善膝关节疼痛或减少软骨体积丢失。
★维生素K:维持软骨矿化稳态
维生素K的潜在获益可能主要体现在原本维生素K不足的人群。
【维生素K1:随机对照试验】
一项纳入378名60–80岁成年人、持续3年 的随机双盲试验中,每日补充 500 μg维生素K1,整体上并未显著降低手部OA、骨赘或关节间隙狭窄的发生。但在基线维生素K不足、随后恢复至充足水平的人群中,关节间隙狭窄的发生率降低约47%。
口服K2可能有助于维持软骨基质完整性。
【维生素K2:动物实验】
2026年的研究发现,在MIA诱导的膝OA大鼠中,每日口服 8 μg维生素K2、持续28天 后,治疗组的软骨组织学损伤明显减轻,Mankin评分由对照组的 11.10降至4.25,同时Ⅱ型胶原保存增加、MMP-13表达降低。
谷禾搜索多篇相关文献,整理的其他和OA干预相关的生物活性物质/天然提取物如下:
编辑
后生元和菌群代谢物
不一定要补活菌
严格来说,现代“后生元”的定义更偏向失活微生物及其组分,短链脂肪酸、胆汁酸等更准确地说属于微生物代谢物。
但在骨关节炎干预中,两者的逻辑非常接近:不一定依赖活菌长期定植,而是直接利用微生物功能。
前文已经详细介绍了丙酸、胆汁酸、GABA、色氨酸代谢物等菌群代谢物在骨关节炎中的作用机制,这里不再展开。 从干预角度看,它们更重要的意义在于:未来可能针对特定代谢物及其受体进行更精准的调节。
FMT
粪菌移植,重建整个菌群
粪菌移植(FMT)是彻底的菌群干预方式之一,把一个完整的微生物群落转移给受体。
【人体供体+动物实验】
2020年的一项研究将健康人、单纯膝OA患者,以及OA合并代谢综合征患者的粪便菌群分别移植给无菌小鼠。
结果发现,接受OA合并代谢综合征人群菌群的小鼠,在关节损伤后出现了更严重的OA,同时肠道通透性和 IL-1β、IL-6、MIP-1α 等全身炎症指标升高。
其中,Fusobacterium、Faecalibacterium增加以及Ruminococcaceae减少,还与OA严重程度和炎症指标存在相关性。
2024年的另一项动物研究则从相反方向证明了这一点:将相对抗骨关节炎的MRL小鼠菌群移植到普通小鼠后,在特定时间窗口内可明显降低OA组织学损伤、滑膜炎和骨赘形成。
注:FMT远比补充某一种益生菌复杂,目前还需要更多人体临床证据支持用FMT治疗OA。
下一代微生态治疗
更精准的设计
下一代益生菌:寻找与功能相关的菌株
2025年一项OA人群研究发现,OA患者中普拉梭菌(Faecalibacterium prausnitzii)和Bacteroides plebeius减少。普拉梭菌是典型的产丁酸菌,也被视为潜在的“下一代益生菌”候选。
工程菌:让细菌在肠道里定向生产药物
合成生物学还可以对细菌进行改造,使其在肠道中持续产生短链脂肪酸、抗炎分子或屏障保护因子。
相比直接反复服药,这种思路理论上可以在肠道局部持续工作。但对于OA来说,目前仍然属于概念和前临床阶段。
噬菌体:精准“删菌”
噬菌体能够感染特定细菌,因此理论上可以针对某些有害菌株进行更精准的清除,而不像抗生素那样大范围破坏整个菌群。但对于OA,目前处于长远方向。
细菌细胞外囊泡
细菌细胞外囊泡(BEVs)可以携带蛋白质、脂质、核酸和代谢物,而且体积只有几十到几百纳米。未来可以筛选有益菌来源BEVs,或者进行工程化改造,用它们递送抗炎或软骨保护分子。
运动
作用肌肉和关节,也可能是肠道
运动本身就是OA管理中证据成熟的一部分:它能够增强关节周围肌力、改善稳定性和功能,并帮助控制体重。
运动可以降低肠源性LPS
【动物实验】
在高脂饮食诱导的肥胖型OA小鼠中,中等程度的自主跑轮运动提高了菌群多样性,并部分逆转高脂饮食造成的菌群变化。
例如运动后Prevotellaceae、Bifidobacteriaceae等增加,而与高脂饮食和内毒素环境相关的部分菌群下降。
更关键的是,运动后血液和滑液中的 LPS下降,同时TLR4和MMP-13表达降低,软骨损伤也减轻。
力量训练:运动干预中证据充分的方法之一
【Meta分析】
2024年一项系统综述和Meta分析显示,力量/抗阻训练能够显著改善膝OA患者的疼痛、关节僵硬和身体功能。
另一项涵盖27项研究、1712名OA患者的Meta分析也发现,抗阻训练可同时改善疼痛、肌力和功能。
对膝OA来说,重点通常是加强股四头肌、臀肌和其他下肢稳定肌群。肌力提高后,可以改善膝关节稳定性和负荷分配,从而减轻活动时的不适。
八段锦:改善疼痛、僵硬、身体功能和总评分
【Meta分析】
2025年一项Meta分析纳入12项随机对照试验、共846名膝OA患者,结果显示,八段锦可改善 WOMAC疼痛、僵硬、身体功能和总评分。
不过,纳入研究之间异质性较高,部分研究方法学质量有限,因此更适合作为OA的辅助运动方式,而不是替代常规治疗。
八段锦同时结合缓慢动作、呼吸调节和注意力训练,因此除了改善关节功能,也具有一定的身心调节特点。
太极:疼痛、僵硬和身体功能改善
【临床RCT证据】
太极也有较多临床证据。 2025年一项纳入13项随机对照试验、701名膝OA患者的Meta分析发现,太极可改善疼痛、关节僵硬和身体功能。太极同时包含低冲击运动、重心转移、平衡训练和呼吸调节,因此既属于运动干预,也兼具一定的身心调节特点。
针对太极、瑜伽和八段锦等身心运动的Meta分析显示,这类干预除改善疼痛和功能外,还可改善心理健康和抑郁症状。
睡眠和压力管理
切断疼痛循环
失眠认知行为疗法:睡眠改善
【随机对照试验】
一项100名同时患有膝OA和失眠患者的随机试验发现,经过8次失眠认知行为治疗(CBT-I)后,夜间清醒时间明显改善;而睡眠改善程度还能够预测之后疼痛的下降。
疼痛应对技能训练:学习放松,疼痛改善
【随机对照试验】
一项纳入256名膝或髋OA慢性疼痛患者的研究发现,经过10次疼痛应对技能训练(PCST)后,患者的疼痛强度、身体功能、心理困扰和自我效能均有所改善。PCST主要训练患者识别灾难化思维、调整活动节奏,并学习放松和疼痛应对策略。
正念:有一定的长期疼痛获益
【试点随机试验】
2022年一项40名膝或髋OA患者的研究评估了8周正念减压(MBSR)。3个月时WOMAC疼痛和功能并未显示明显优势,但6个月时VAS疼痛下降更多,提示正念可能有一定长期疼痛获益,不过目前证据仍较初步。
压力管理并不是简单地保持心情好。
对于长期疼痛、压力大或疼痛灾难化明显的人,CBT/PCST、正念练习、呼吸和放松训练等结构化方法,更有证据基础。
关于肠道菌群与骨关节炎,科学界已经从最初的发现两者有关,逐渐走到了肠屏障、LPS、短链脂肪酸、胆汁酸、色氨酸代谢、免疫调节乃至细菌细胞外囊泡等更具体的机制层面。
机械负荷、衰老、肥胖、代谢异常、炎症、肌力和疼痛敏化仍然共同决定着疾病的发展,而肠道菌群更可能是其中一个可以调节的环节。
下一代益生菌、定义菌群、工程菌、微生物代谢物和BEVs,也可能让基于菌群的调节从宽泛概念逐渐走向精准治疗。
未来值得期待的,是逐渐走向“菌群—代谢物—免疫—临床表型”联合分析,并通过更大规模的人体研究和随机试验,找出哪些骨关节炎患者更适合微生态干预,以及应该干预哪一个环节。
肠道菌群检测在其中,可以与代谢组、炎症指标、体重和血糖血脂等临床信息结合起来看,帮助我们观察功能潜力及干预前后的变化趋势。
与其把关节当成一件会磨损的零件,不如把它看作处在全身炎症与代谢网络中的一个器官,而这张网,有一部分可以由你的饮食、菌群、运动和作息去改变。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Wei J, Zhang C, Zhang Y, Zhang W, Doherty M, Yang T, Zhai G, Obotiba AD, Lyu H, Zeng C, Lei G. Association Between Gut Microbiota and Symptomatic Hand Osteoarthritis: Data From the Xiangya Osteoarthritis Study. Arthritis Rheumatol. 2021 Sep;73(9):1656-1662.
Seow SR, Mat S, Ahmad Azam A, Rajab NF, Safinar Ismail I, Singh DKA, Shahar S, Tan MP, Berenbaum F. Impact of diabetes mellitus on osteoarthritis: a scoping review on biomarkers. Expert Rev Mol Med. 2024 Apr 12;26:e8.
Chowdhury T, Bellamkonda A, Gousy N, Deb Roy P. The Association Between Diabetes Mellitus and Osteoarthritis: Does Diabetes Mellitus Play a Role in the Severity of Pain in Osteoarthritis? Cureus. 2022 Jan 20;14(1):e21449.
Boer, C.G., Radjabzadeh, D., Medina-Gomez, C. et al. Intestinal microbiome composition and its relation to joint pain and inflammation. Nat Commun 10, 4881 (2019).
Ghoullam G, El Binoune I, Amine B, El Moubarik I, Alaoui Kadiri Z, Zemrani S, Rostom S, Bahiri R. Mediterranean Diet Adherence and Its Association With Pain and Functional Status in Knee Osteoarthritis: A Cross-Sectional Study. Cureus. 2026 Jun 12;18(6):e110743.
Kasprzyk N, Nandy S, Grygiel-Górniak B. Diet in Knee Osteoarthritis-Myths and Facts. Nutrients. 2025 May 30;17(11):1872.
Asadi S, Grafenauer S, Burley CV, Fitzgerald C, Humburg P, Parmenter BJ. The effectiveness of dietary intervention in osteoarthritis management: a systematic review and meta-analysis of randomized clinical trials. Eur J Clin Nutr. 2025 Oct;79(10):959-971.
Fladerer-Grollitsch JP, Klein T, Kompek A, Steiner N, Menzel D, Schön C. Effects of cartilage-supporting nutritional supplementation on knee osteoarthritis symptoms and quality of life in a 12-week randomized double-blind placebo-controlled pilot study. Sci Rep. 2025 Jul 15;15(1):25625.
Prinz E, Schlupp L, Dyson G, Barrett M, Szymczak A, Velasco C, Izda V, Dunn CM, Jeffries MA. OA susceptibility in mice is partially mediated by the gut microbiome, is transferrable via microbiome transplantation and is associated with immunophenotype changes. Ann Rheum Dis. 2024 Feb 15;83(3):382-393.
Kouraki A, Franks S, Vijay A, Kurien T, Taylor MA, Smith SL, Smith B, Kelly A, Valdes AM. Effect of Prebiotic Supplementation With and Without Physiotherapy on Pain and Pain Sensitivity in People with Knee Osteoarthritis. Nutrients. 2026 Feb 24;18(5):714.
Karim A, Khan HA, Iqbal MS, Ahmad F, Qaisar R. Probiotics’ supplementation alleviates disease severity and improves postural balance by repairing intestinal leak in patients suffering from osteoarthritis: a double-blinded clinical trial. Br J Nutr. 2024 Dec 28;132(12):1602-1610.
Chen K, Sun Y, Cui L, Zhu Y, Zhang B, Wu L. Effectiveness and safety of probiotics in treating knee osteoarthritis: an updated systematic review and meta-analysis of randomized controlled trials. Front Med (Lausanne). 2026 Jun 16;13:1799943.
Law L, Heerey JJ, Devlin BL, Brukner P, De Livera AM, Hebert JR, Price S, White NP and Culvenor AG (2025) The inflammatory potential of diet in adults with knee osteoarthritis: sex-specific associations with quality of life, sleep, fatigue and mental health. Front. Nutr. 12:1624852.
Huang K and Cai H (2026) Mechanisms of pain occurrence in osteoarthritis: peripheral triggers, sensitization, and the path to persistence. Front. Immunol. 17:1820875.
Neogi T, Felson DT, Sarno R, Booth SL. Vitamin K in hand osteoarthritis: results from a randomised clinical trial. Ann Rheum Dis. 2008 Nov;67(11):1570-3.
Fladerer-Grollitsch JP, Klein T, Kompek A, Steiner N, Menzel D, Schön C. Effects of cartilage-supporting nutritional supplementation on knee osteoarthritis symptoms and quality of life in a 12-week randomized double-blind placebo-controlled pilot study. Sci Rep. 2025 Jul 15;15(1):25625.
谷禾健康
结直肠癌(CRC)与肠道菌群之间的关系已有较充分的研究证据,但不同地区、不同人群以及不同研究设计所获得的具体菌群特征往往存在差异。相同细菌在不同队列中,也可能呈现出不同程度的疾病相关性。因此,单纯依赖某一个菌种的出现或丰度变化,往往难以形成稳定、可重复、具有广泛适用性的疾病标志物。
这也意味着,菌群检测真正需要解决的,并不是简单判断“某一种菌增加了还是减少了”,而是要从高度个体化、易受地域、饮食、生活方式及短期生理状态影响的菌群数据中,识别出跨人群、可重复、具有生物学解释力的稳定信号。换言之,疾病相关菌群更可能表现为一种由多个菌种、功能基因、代谢通路及菌群互作共同构成的整体状态。
近日,一篇发表于《Gut Microbes》的研究提出了另一种解释:结直肠癌相关菌群可能并不是由一组固定的菌群物种定义的,而是由不同细菌共同形成某种趋同的功能状态。也就是说,虽然不同患者体内的具体菌种可能并不完全相同,但它们可能通过不同的菌种组合,共同实现相似的营养获取、环境适应、微生物竞争以及与宿主相互作用的功能。
这一发现与谷禾健康构建菌群检测分析模型的基础逻辑高度契合。谷禾并不将检测结果简单建立在单一菌种或单一丰度指标之上,而是依托海量肠道菌群数据,重建和训练菌群基础大模型,在菌种组成的基础上进一步识别菌群功能、代谢通路及其相互作用关系,并通过功能和健康轴提取与疾病状态相关的综合特征。这样,模型关注的就不再是某一个菌种在某一次采样中的短期波动,而是菌群整体是否形成了与特定疾病或健康状态相对应的功能模式。
该研究利用泛基因组和共关联基因簇(CAGs)框架,分析 13 种细菌、3711 个 CAG,并在来自日本、美国和欧洲的三个 CRC 宏基因组队列中评估其关联。结果显示,CRC 与健康相关的菌群特征并不能简单归结为某一类固定物种:谱系内较稳定的“专职型”特征与跨谱系分布的“兼职型”特征可以同时存在,而不同物种之间还出现了功能趋同与组合关联。
编辑
这说明,疾病相关信号可能同时存在于多个层次:既包括菌种和菌株层面的变化,也包括基因簇、功能模块、代谢通路以及不同菌群成员之间的协同或拮抗关系。对于实际检测而言,从单一指标转向多维特征整合,能够减少对某一个菌种、某一个基因或某一次丰度变化的依赖,从而更接近复杂疾病真实的微生态基础。
谷禾健康模型正是基于这一思路,将海量样本中的物种组成、菌群丰度、功能基因、代谢能力、菌群互作及宿主相关健康特征进行系统整合,并通过模型训练识别不同疾病状态下反复出现的功能组合和代谢网络。由于疾病相关的生态改变可能由不同菌种通过趋同功能共同实现,因此,即使个体之间的具体菌群成员存在差异,模型仍有机会通过更高层级的功能信号识别其共同的疾病相关状态。这也是谷禾健康菌群检测模型能够兼顾准确性、稳定性与生物学解释力的重要基础。
物种组成和丰度是理解肠道菌群的重要基础,也是目前微生物组研究中最常用的信息维度之一。但对于结直肠癌(CRC) 这类复杂疾病,仅依赖单一物种的升高或降低,往往还不足以解释菌群与疾病之间复杂的生物学关系。
这篇研究进一步把分析尺度延伸到了泛基因组和功能基因层面。原因在于,同一物种内部不同菌株的基因组成并不完全一致,而系统发育距离较远的细菌,也可能因为趋同进化、基因获得与丢失,甚至水平基因转移,携带相似功能的基因。
对实际菌群检测而言,研究尺度越细并不意味着单一指标就越有解释力。复杂疾病往往涉及多种微生物、功能和生态关系,因此,如何基于足够大的参考数据库,从多个菌群特征中识别稳定的疾病相关模式,可能比单独追求某一个分类层级更重要。
基于泛基因组的CAG特征解析
泛基因组关注的不是某个物种的一株代表菌,而是这个物种所有已知菌株共同拥有的基因集合。研究重点分析了CAGs(共关联基因簇)。CAG由一组共同出现的蛋白编码基因构成,可以理解为比物种更精细的功能单元。
研究覆盖13种细菌,共分析3711个CAG,并利用来自日本、美国和欧洲的三个独立CRC宏基因组队列进行验证,总体包括379名CRC患者和347名健康对照。
从物种泛基因组到CRC相关gene bin的识别
编辑
值得注意的是,三个队列在具体 gene bin 层面的一致性并不高。作者认为,这可能与测序平台、测序深度、来源人群以及生物学异质性等差异有关。因此,这项研究关注的重点并不是某一个具体 gene bin 能否在不同人群中反复出现,而是不同细菌是否会在更高层面的功能上表现出趋同。
这一点对于菌群检测模型具有重要启发。现实检测中,样本采集、测序深度、个体饮食、药物使用及肠道短期状态,都可能导致部分菌种或基因簇的检测结果发生变化。如果模型过度依赖某一个具体菌种、某一个基因簇或某一个丰度阈值,就可能在不同时间、不同人群或不同检测条件下产生较大偏差。
谷禾健康模型通过海量菌群数据训练,不仅学习单个菌种或基因簇与疾病之间的关系,更重要的是提取多个菌种之间的共同功能、代谢网络和健康状态特征。当某一个菌种在样本中暂时减少,或者某一个功能由其他菌种补偿时,模型可以通过整体功能网络进行综合判断,而不是简单地将局部丰度变化等同于疾病风险变化。
-专职型(Specialists)
这位类基因主要集中在某一个特定菌株谱系中,谱系保守性较高,说明它们更可能长期伴随这一支菌株稳定存在。
-兼职型 (Side hustlers)
这类基因并不固定存在于某一个谱系,而是分散出现在不同菌株中,表现出较强的基因组可塑性。
为了描述这种差异,作者设计了一个单系性评分(monophyly score)。
评分越高,说明某个基因簇越集中在特定进化谱系中;
评分越低,则说明这个基因簇在系统发育树上的分布越分散。
编辑
注:“专职型”和“兼职型”更像是描述谱系分布的两个端点,而不是把所有基因硬性分成两个互斥类别。
普拉梭菌是整篇文章里很有代表性的一个例子。
普拉梭菌(Faecalibacterium prausnitzii)通常被认为是健康相关菌,同时也是重要的产丁酸菌。但这篇研究发现,普拉梭菌内部同时存在健康相关和CRC相关的基因簇。
两者的谱系分布不同。
健康相关CAG具有更高的monophyly score,更符合稳定存在于特定谱系中的专职型特征;
CRC相关CAG则表现出更低的单系性,更接近分散在不同菌株中的兼职型。
这说明,同一种细菌内部可以同时存在不同的功能模块。
编辑
注:这个结果并不意味着CRC相关基因普遍都是“兼职型”。在所有物种中,只有F. prausnitzii表现出明确差异,其他物种在多重校正后并没有出现同样的趋势。CRC相关和健康相关的基因特征中,都可能同时存在两种模式。不同的是这两类特征在不同菌种中的组合和比例。
当作者把不同细菌中的结直肠癌相关CAG一起分析时,出现了一个重要现象:功能趋同(functional convergence)。
虽然这些基因簇来自不同细菌、不同谱系,但其中反复出现了一些相似功能,尤其包括:
T4SS,IV型分泌系统
T4SS涉及细菌间或细菌与宿主之间的物质传递,也与移动遗传元件有关;
TonB依赖性受体
TonB相关系统参与铁等营养物质摄取;
RagB/SusD家族营养摄取蛋白
RagB/SusD则与复杂营养底物的利用有关。
编辑
这些功能并不相同,但有一个共同点:都与细菌在复杂肠道环境中的生存和竞争能力有关。
作者进一步发现,共有14类蛋白家族反复出现在至少5个不同gene bins和多个细菌物种中。
编辑
这提示,CRC相关肠道环境可能并不是选择某一种固定细菌,而是在选择某些适合这一生态位的功能能力。
这正是谷禾健康模型从菌种层面进一步提取功能和代谢网络的理论基础。模型通过海量菌群数据识别不同物种之间重复出现的功能信号,并将这些功能信号与疾病表型、代谢状态及健康轴进行关联。相比依赖单一菌种丰度的检测方式,功能层面的特征通常具有更强的跨个体解释能力,也更不容易受到某个菌种短期波动的影响。
因此,即使个体A和个体B的菌群组成并不完全相同,只要其菌群在营养摄取、铁竞争、代谢转化、宿主互作等方面呈现出相似的功能网络,谷禾健康模型就有可能识别出两者所处的相近疾病相关状态。这种“不同菌种、相似功能、共同预测”的逻辑,有助于提升模型在不同人群中的泛化能力。
Fusobacterium animalis的多重进化策略
Fusobacterium animalis很好地体现了这种复杂性。
研究发现,它的 CRC 相关 gene bins 横跨高、低不同的单系性评分;其中多个基因簇携带 T4SS 相关功能,但这些功能所在的基因簇具有不同的谱系来源。
编辑
这意味着,即使在同一个物种内,与 CRC 相关的功能也可能同时依赖两种模式:
一部分长期保留在特定谱系中;
另一部分更加灵活,可能经历反复获得或丢失。
CRC 相关生态位对“功能能力”的选择,并不一定要求某一个固定菌株在所有个体中扩张。
如果一种菌群特征未来希望用于检测或长期追踪,一个现实问题是:它在同一个人身上是否足够稳定?作者利用纵向样本进一步评估了 pangenome bin 的时间稳定性。
总体上,同一个体不同时间点之间的 gene bin 丰度相关性高于不同个体之间;对大多数研究物种而言,即便经历肠道清洁这样的急性扰动,bin 层面的结构也没有出现大幅变化。这说明,部分菌株/基因层级信号具有一定的个体内持续性。
但稳定性也并非所有菌都一样。Escherichia coli和Fusobacterium animalis的个体内时间相关性相对较低,提示某些菌的基因组构成可能更容易波动。
“时间稳定”并不等于“已经具备诊断价值”:这些信号能否提高 CRC 识别能力,仍然需要在前瞻性人群中与物种水平模型进行直接比较。
同一个人的菌群会变化,但人与人之间的差异往往更大。因此,一个指标是否“异常”,不仅取决于某一次检测值,还与个人长期基线和参照人群有关。未来如果希望提高菌群信号的解释力,横向的人群参照和纵向的个人变化可能需要同时考虑。
作者进一步做了不同物种 gene bins 之间的两两组合分析,希望寻找“单独看不明显、组合后关联增强或减弱”的候选关系。
研究在Yachida队列中对不同物种的pangenome bins进行了两两组合分析,并在logistic回归模型中加入交互项。仅两两组合就拟合了980,001个模型,随后按照交互项的统计显著性排序,选取前200组进行探索性分析。
一旦从单菌、单基因进入组合分析,可比较的可能性会呈指数式增加。 这项研究仅考察gene bin的两两组合,就产生了接近98万个模型;如果继续加入更多菌种、功能、代谢物以及宿主因素,数据维度还会进一步扩大。因此,高维菌群研究困难的是如何从大量可能的组合中区分稳定信号、偶然共现和统计噪声。
1 协同关联,CRC风险增加
F. animalisbin 66与 Clostridium scindens bin 169
最突出的一组是 Fusobacterium animalis bin 66 与 Clostridium scindens bin 169。
在 Yachida 队列的逻辑回归模型中:
两者同时存在时,模型中的CRC概率约为0.91;而只出现其中一个bin时,CRC概率约为0.45。
注:这里的“0.91”是特定队列、特定统计模型中的条件概率,不能解释为“一个人携带这两个基因簇就有 91% 的患癌风险”。
基于已有生物学知识,作者提出假设:
C. scindens 可能通过改变胆汁酸环境,为携带特定功能基因的F. animalis 提供更加适合的生态位,两者进一步形成协同的CRC相关环境。
注:目前这一点仍然只是统计关联和机制假设。仍需要共培养、动物模型和代谢检测进一步验证。
这里还牵出了一条重要的菌群-胆汁酸-宿主共代谢轴。人体首先在肝脏合成初级胆汁酸,进入肠道后,再由部分肠道细菌进一步转化。C. scindens是一种具有较强胆汁酸7α-脱羟基化能力的细菌,可以将初级胆汁酸转化为包括脱氧胆酸(DCA)在内的次级胆汁酸。DCA与DNA损伤和结肠细胞凋亡抑制有关。
胆汁酸因此并不只是帮助脂肪消化的物质,它同时也是能够影响肠道上皮、代谢和信号通路的活性分子。已有研究还发现,饮食改变胆汁酸输入后,也可能进一步改变肠道微生物对胆汁酸的转化。 因此,这类跨物种组合值得关注的地方,不仅是两种菌同时出现,还有它们是否共同塑造了一个不同的代谢环境。
2 健康相关菌,也可能参与CRC组合
普拉梭菌bin 166 和 F. animalisbin 94
这二者同时存在时,CRC关联明显增强。尤其值得注意的是,普拉梭菌通常被视为健康相关菌,但普拉梭菌 bin 166本身属于低丰度、低单系性评分的“兼职型”基因簇。
这个结果再次说明,用“好菌/坏菌”的物种标签概括一个物种,可能会掩盖菌株和基因层面的差异。
3 协同 / 拮抗型基因组合
例如,Eggerthella bolteaebin 345与 Escherichia colibin 583同时存在时,与较低的CRC概率相关。
协同和拮抗的CRC/健康相关基因组箱
编辑
另一方面,E. colibin 79与Ruminococcus torquesbin 59共同存在时,CRC关联又明显增强。
有意思的是,R. torquesbin 59的单系性评分为1.0,是非常典型的“专职型”;而与它协同的E. coli bin 79则属于另一种谱系分布模式。
这些结果提示,CRC相关菌群更像一个由多个功能模块共同组成的生态网络。
注:该研究目前仍属于探索性工作,提供一种“概念验证”式的方法框架,还不能直接等同于可用于临床诊断的新指标。研究只覆盖 13 种细菌,古菌、真菌和病毒并未纳入;作者强调,未来还需要扩大菌种和人群范围,并结合基因组共线性、质粒分析、机制实验及前瞻性队列进一步验证。
这项研究带来的一个重要变化,是将CRC相关菌群的观察尺度,进一步延伸到同一物种内部携带哪些基因、不同细菌是否共享相似功能,以及这些特征之间如何组合出现。
这项科研工作的价值,或许并不在于立即提供一套可直接用于CRC检测的新指标,而在于提出了一种值得进一步验证的研究思路:面对高度复杂且存在显著个体差异的肠道菌群,与其依赖某一个孤立的菌种或功能指标,不如基于大规模、长期积累的真实世界样本,系统识别跨人群、可重复、具有生物学意义的菌群功能模式。只有在足够丰富、多样且持续扩展的样本基础上,才能进一步验证这些功能信号的稳定性、泛化能力及其在疾病预测中的实际价值。
主要参考文献
Lee J, Minot S, Dey N. Pangenome analysis reveals both niche-specific “specialists” and microbial “side hustlers” in colorectal cancer microbiomes. Gut Microbes. 2026 Dec 31;18(1):2728331.
谷禾健康
普雷沃氏菌属(Prevotella)在肠道内占据着极其特殊而复杂的地位。作为拟杆菌门的重要基石成员,普雷沃氏菌广泛定植于人群的肠道、口腔及泌尿生殖道,并因其卓越的复杂植物性碳水化合物分解能力,被确立为非西方化传统高纤维饮食人群肠道微生态的核心代表(普雷沃氏菌型)。
普雷沃氏菌在医学界呈现出令人困惑的“功能悖论”与“双刃剑”效应:一方面,它被视为发酵膳食纤维、合成保护性短链脂肪酸并维护宿主代谢与黏膜稳态的基石有益菌;另一方面,多项临床与流行病学研究将其与牙周炎、细菌性阴道病、类风湿性关节炎、代谢综合征以及胃肠道恶性肿瘤的恶化直接关联。
这种“天使与恶魔”并存的矛盾现象,使普雷沃氏菌属成为微生物学界最引人入胜、也最具转化挑战的研究对象之一。
随着宏基因组学与高通量测序的普及,人们逐渐解开了其“属水平丰度”背后的复杂性。研究者发现,普雷沃氏菌属并不是一个功能完全一致的整体,不同物种、不同菌株之间在碳水化合物利用、黏液降解、代谢产物生成、宿主黏附以及免疫调控等方面存在显著差异。换言之,“普雷沃氏菌增多”本身并不能直接等同于健康,也不能简单地被视为疾病标志。
菌株、饮食、群落、位置
决定功能方向的第一层,饮食提供了什么底物
微生物的功能都需要底物。一个拥有复杂多糖发酵能力的菌株,生活在富含阿拉伯木聚糖、果聚糖和其他可发酵纤维的肠道里,与长期生活在低纤维、高脂肪、高动物蛋白环境中的同类,代谢状态并不相同。
欧美人群的多是高脂代谢菌株,东亚人群多为谷物纤维代谢菌株。
同样一套代谢机器,输入不同,输出自然不同
高纤维饮食提供大量植物多糖(长期摄入全谷物、豆类、根茎、蔬菜等食物),容易把整个生态系统的碳流推向发酵和短链脂肪酸网络。
西方化饮食则改变可利用底物结构(高脂、高动物蛋白、低纤维饮食),也改变胆汁酸、黏液层、氧化还原状态和菌群竞争关系。
注:其他因素比如肠道转运速度会影响细菌可利用底物和停留时间;黏膜通透性决定细菌是否容易接触免疫系统;胆汁酸组成改变不同菌的竞争优势;慢性炎症提高硝酸盐、ROS 等电子受体水平;抗生素会突然清空部分竞争者;质子泵抑制剂改变胃酸屏障…这些背后都是很具体的一整套适合某些菌株生存的宿主环境。
决定功能方向的第二层,“邻居”改变它发挥作用的方式
真实肠道里没有任何细菌独自生活。
普雷沃氏菌周围可能是具核梭杆菌,也可能是普拉梭菌;可能处在慢性炎症已经形成的菌群网络中,也可能生活在一个短链脂肪酸生产和交叉喂养高度活跃的稳定社区里。
谷禾凭借专利菌群注释方法,可以基于菌群结构来精细化推断区分近似菌种,实现普雷沃氏菌的细分分型。
它所在生态网络允许什么样的代谢关系存在
如果P. intermedia与Fusobacterium nucleatum同时富集,炎症信号、上皮屏障破坏和免疫抑制可能相互叠加。反过来,普雷沃氏菌产生的乙酸、琥珀酸等中间代谢物,也可以成为其他共生菌的底物,经交叉喂养继续转化为丁酸。
这时候,即使两份肠道菌群检测报告同时都显示“Prevotella丰度占比10%”,其生态含义就不同了。
编辑
决定功能方向的第三层,它住在哪里,决定它面对什么生态位
微生物拥有自己的基因组,但它表现出来的功能,是基因组与所在组织共同“计算”的结果。
P. intermedia在牙周袋里,与它出现在健康结肠腔内,并不是同一件事。
牙龈沟有血红素、炎症渗出、氧化还原改变和持续的组织损伤;
结肠则有厚厚的黏液层、极低氧环境、不同的碳源以及高度组织化的黏膜免疫系统。
食物底物、短链脂肪酸、琥珀酸等
它的核心竞争力,是处理别人吃不动的复杂碳水
普雷沃氏菌属最值得关注的基础生物学,是它对复杂碳水化合物的处理能力。
很多普雷沃氏菌属的基因组里存在成套的多糖利用位点(Polysaccharide Utilization Loci,PULs)。
简单说,一套 PUL 不是单独的一种酶,而是一整套从“识别-抓取-切割-运输-继续降解”串在一起的系统。
外膜上的 SusD 样蛋白负责识别特定多糖,邻近糖苷水解酶把大分子切成较短片段,SusC 类转运蛋白再把寡糖送进周质空间,后续脱支酶和水解酶继续拆解,最终送入中心碳代谢和发酵网络。
因此,高纤维饮食与普雷沃氏菌属丰度之间的关系,本质上是一场生态选择——谁最擅长利用每天源源不断进入肠道的底物,谁就更容易获得增长优势。
高纤维饮食之后,看这些底物最终被怎样利用
复杂多糖经普雷沃氏菌处理之后,可以进入琥珀酸途径,生成乙酸、丙酸等代谢产物;某些与保护性表型相关的菌株,如P. melaninogenica、P. rothiae,又与丁酸相关的代谢网络联系在一起。
这些代谢物随后被宿主上皮吸收,也可能被其他细菌继续利用。
这意味着,“普雷沃氏菌属丰度上升”只是生态变化的第一层。再往下一层,需要看它是否伴随丙酸、丁酸等功能产物增加;继续往下,还可以观察宿主屏障、免疫细胞和代谢表型是否随之改变。
这也是为什么,单纯说“吃纤维可以增加某一种菌”其实略显粗糙。更需要观察的是,碳最终流向哪里。
发酵能力相似,代谢输出可以完全不同
琥珀酸在这里尤其有意思。
它既可以是细菌代谢网络中的正常中间产物,也可以在特定失衡状态下大量积累。研究表明,过多琥珀酸进入上皮细胞后,可影响 HIF-1α 稳定性以及细胞应激状态,并进一步牵动内质网应激和炎症反应。
于是,一个原本属于“碳水发酵”的代谢节点,开始与上皮损伤和慢性炎症连接起来。
这就是微生物代谢研究里一个很重要的思维方式:同一种代谢物,在不同浓度、不同组织位置以及不同宿主状态下,可能产生完全不同的生物学效应。
短链脂肪酸如此,琥珀酸也是如此。
P. copri 的争议,还提示了另一条代谢分叉:支链氨基酸
在部分菌株中,与亮氨酸、异亮氨酸等支链氨基酸合成相关的基因更丰富;在特定饮食和宿主代谢背景下,这类代谢能力被认为可能参与胰岛素抵抗相关表型。
也就是说,讨论P. copri时,还需要看“它是哪一个株系、携带哪些代谢模块”。
从复杂多糖到短链脂肪酸,从琥珀酸到支链脂肪酸,普雷沃氏菌更像一个具有高度可塑性的代谢平台。
环境决定哪一套程序获得优势。
想了解更多细节的朋友可以滑动阅览:
普雷沃氏菌属于拟杆菌门、拟杆菌纲、拟杆菌目、普雷沃氏菌科,多为革兰氏阴性、无芽孢、无鞭毛的专性厌氧杆菌。
其外膜含 LPS;部分物种具有 IX 型分泌系统(T9SS),可将黏附蛋白、蛋白水解酶及其他底物转运至细胞表面,部分分子也可通过外膜囊泡(OMVs)进入周围环境。
不同物种和菌株基因组差异较大,部分菌株还携带 β-内酰胺、大环内酯、四环素相关抗性基因及可移动遗传元件。
对于理解炎症和菌株安全性,以上这些结构特征也很重要。
<向上滑动阅览>
前面这些菌株、饮食和群落差异,最终会落到宿主身上。
在高膳食纤维环境中,部分 Prevotella参与复杂碳水发酵,产生乙酸、丙酸、琥珀酸等代谢物,并通过交叉喂养支持其他产丁酸菌,从而提高整个群落的短链脂肪酸输出。增加的丁酸等短链脂肪酸,有利于维持肠屏障和免疫稳态。
编辑
另一方向上,某些促炎相关Prevotella 菌株可以通过 LPS 和其他微生物组分激活TLR4/NF-κB、TLR2-Th17-IL-17 等炎症通路;琥珀酸等代谢变化还可能增加上皮应激和屏障损伤。持续的炎症与屏障破坏相互强化,局部环境便逐渐从短暂免疫反应转向慢性炎症。
编辑
doi.org/10.3389/fonc.2026.1855577
当这种促炎状态长期存在,它又会怎样进入肿瘤生态?
从单向作用到生态反馈
肿瘤组织自己就是一个特殊生态位。
这里有缺氧、有坏死、有异常血管、有代谢重编程,还有大量功能失调的免疫细胞。这样的环境可以反过来筛选适合在其中生存的细菌。
编辑
某些细菌促进炎症和组织损伤,组织变化又为这些细菌提供新的生态位;细菌继续改变局部代谢与免疫状态,肿瘤细胞也在不断重塑自己的周围环境。
因此,在肿瘤组织里发现普雷沃氏菌属,既可能记录肿瘤生态环境已经发生改变,也可能意味着其中某些菌株参与维持这种环境。
编辑
doi.org/10.3389/fonc.2026.1855577
它经常和具核梭杆菌一起出现
结直肠癌微生物学里,具核梭杆菌(Fusobacterium nucleatum)已经被研究多年。
它拥有FadA、Fap2等黏附和免疫调节相关分子,可以影响 E-cadherin/Wnt-β-catenin 通路、NK/T 细胞功能以及髓系抑制细胞募集。
有意思的是,一些肿瘤样本中 P. intermedia、P. nigrescens 等口源性普雷沃氏菌会和具核梭杆菌共同富集。
两者一旦进入同一个病灶,作用可能发生叠加
具核梭杆菌提供强黏附和免疫逃逸能力
普雷沃氏菌则可能增强蛋白水解、炎症和屏障破坏;
NF-κB、NLRP3、Wnt/β-catenin、STAT3 等信号网络因此彼此衔接。
编辑
doi.org/10.3389/fonc.2026.1855577
这类“微生物协同致癌”证据在体外实验、动物研究以及部分人群观察中都已出现,但人体层面的完整因果链仍需要纵向和干预研究继续验证。
这其实比寻找“某一种癌菌”更接近肿瘤真实生态:
肿瘤里值得研究的单位,很可能不是一种菌,而是一组协同工作的微生物网络。
口-肠轴与异位定植
每天都有大量口腔细菌随唾液进入消化道。大多数时候,它们难以在稳定的下消化道生态系统里建立长期优势。
但牙周炎、胃肠屏障损伤、局部炎症、药物和菌群失衡会改变这一门槛。
编辑
doi.org/10.3389/fonc.2026.1855577
P. intermedia、P. nigrescens等口源菌就可能通过吞咽进入消化道,也可能在牙龈屏障破损时进入循环。对于已经具有坏死、缺氧和黏膜结构破坏的肿瘤组织,这些菌获得了定植机会(此前没机会定植)。
微生物影响肿瘤,还深入到表观遗传层面
慢性炎症不仅改变细胞因子浓度,也会影响宿主细胞的转录和表观遗传程序。在普雷沃氏菌相关研究中:
一条路线涉及 DNA 甲基化
长期 IL-6、IL-1β 等炎症信号可影响 DNMT 等 DNA 甲基转移酶,从而改变包括 CDKN2A/p16 在内的抑癌相关基因表达。
另一条更前沿的路线涉及 m6A RNA 修饰
已有研究把普雷沃氏菌相关炎症环境与METTL3 上调联系起来;METTL3 介导的 m6A 修饰可以改变 c-Myc、STAT3 等转录本稳定性,也与 PD-L1 mRNA 稳定性及免疫逃逸相关。
它出现在癌变过程的哪一步?
结直肠癌研究里,P. intermedia 是目前相对受关注的物种之一。
2022 年的一项研究在结直肠腺癌组织中发现P. intermedia富集,并观察到它与具核梭杆菌共同存在时,对癌细胞迁移和侵袭表现出叠加效应。随后还有研究在控制肠道转运时间、粪便钙卫蛋白和 BMI 等混杂因素后,继续观察到P. intermedia与结直肠癌的相关性。
这类证据开始连接组织定位、菌群协同和功能实验。可人体癌变往往跨越十几年甚至几十年。研究者最终需要解决的是时间顺序:菌群改变是在腺瘤之前就出现,还是在肿瘤改变局部环境之后才显著富集?它参与的是癌变启动、进展、免疫逃逸,还是治疗耐药?
这也是为什么纵向队列尤其关键。
胃癌、口腔癌、食管癌,呈现出不同的组合
胃癌中,肿瘤来源的P. intermedia 与疾病进展之间已有研究联系,其中包括 PLIN3 等宿主通路。
口腔鳞状细胞癌的证据更贴近其原生生态位。患者-对照研究发现P. intermedia检出差异,实验研究则观察到其可促进肿瘤细胞增殖、侵袭和炎症因子释放;较新的研究还把肿瘤内P. intermedia与 ISG15、M2 型巨噬细胞极化和免疫抑制微环境连接起来。
食管鳞癌研究中,P. nigrescens 感染与 Ki67、p-STAT3 等增殖信号升高有关。
Prevotella 并不只生活在肠道。口腔、阴道等黏膜部位都可以发现这个菌属,而不同部位提供的营养、氧化还原状态、邻近菌群和免疫环境并不相同。
为什么某些普雷沃氏菌在牙周袋这样的环境里容易扩增?
口腔是普雷沃氏菌属最重要的生态位之一。特别是P. intermedia、P. nigrescens 等产黑色素厌氧菌,与牙周疾病长期联系在一起。
牙龈炎症时,组织出血增加,血红素和铁资源大量进入牙周袋;与此同时,局部氧化还原环境下降,更适合厌氧菌生长。
吸烟为什么也会和口腔 Prevotella 联系起来?
吸烟并不是单纯把某种细菌吸进嘴里。它改变的是局部氧化还原状态、免疫反应、唾液环境和黏膜状态,因此可以重新排列口腔微生物竞争关系。
吸烟者口腔中P. melaninogenica、P. pallens 等物种可发生富集;如果同时存在口腔卫生差、吞咽功能异常等情况,口腔厌氧菌还可能进入下呼吸道。
这里再次说明:生活方式和微生物之间的关系,往往通过改变生态位实现。
P. intermedia的血红素利用和乳铁蛋白相关铁获取能力,这些特征让它在炎症牙周袋中的竞争力明显提高。
牙周炎改变环境 → 环境选择Prevotella → Prevotella 加重局部炎症和组织破坏 → 新的营养和生态位继续释放
编辑
阴道:群落结构决定它能不能扩张
阴道微生态提供了另一个很典型的例子。
健康状态下,乳杆菌通常占据优势,并通过维持较低 pH等方式限制其他微生物扩张。
当乳杆菌减少、乳酸下降、pH 上升,这种稳定结构被打破后,Prevotella bivia等厌氧菌获得新的生态空间。
随后又会出现微生物之间的代谢互利。例如 P. bivia 与 Gardnerella vaginalis可以通过代谢物交换促进彼此生长,帮助致病性生物膜形成。
注:这和肠道里的 普雷沃氏菌和具核梭杆菌协同并不是同一个机制,却在生态学上讲的是同一件事:环境先改变竞争规则,随后微生物之间的合作进一步稳定新的失衡状态。
从黏膜到关节:影响还可以延伸到远端
环境依赖性还有一个更复杂的层面:微生物生活在黏膜,但它引起的免疫变化未必停留在原来的位置。
类风湿关节炎是其中较受关注的例子。
部分研究发现,P. copri与类风湿关节炎人群中的菌群变化存在关联,而 Prevotella相关的 TLR、Th17 和 IL-17 等免疫通路,也被用于解释黏膜微生物变化与远端炎症之间可能存在的连接。
在特定类风湿关节炎模型和宿主背景下,高纤维饮食与 P. copri甚至可能协同加重炎症。
注:营养学进入微生态时代以后,一个越来越清楚的方向,就是从“这种食物平均有什么作用”,走向:这种底物,在这个人的这套菌群里,会被谁利用,最后生成什么?
神经、过敏、IBS 、多发性硬化研究
部分儿童队列中,自闭症谱系障碍与较低 Prevotella丰度出现相关;
一些婴幼儿研究观察到P. copri定植与食物过敏风险存在关系;
多发性硬化动物研究中,Prevotella histicola 显示出增加 Treg、降低 Th17 相关炎症的潜力。
腹泻型肠易激综合征和部分慢性黏膜炎症研究又发现某些Prevotella富集。
这也说明,这个菌属的生物学意义高度依赖宿主免疫状态、组织生态位和具体菌株。
微生态研究早期,人们很自然地希望找到,哪些菌有益,哪些菌有害;少了就补,多了就杀。这很容易理解,也很方便传播。
普雷沃氏菌,也许正使我们放弃“好菌坏菌”的那套思路。
它可以出现在高纤维、短链脂肪酸丰富的肠道生态中;也可以参与 Th17 型慢性炎症。
它可以通过代谢物帮助维护屏障和 Treg 稳态;某些菌株又可以借助 LPS、T9SS、OMVs 和其他机制推动组织损伤。
它可以是人体长期共生生态系统的一部分,也可以在牙周炎、肠道失衡或肿瘤形成的新生态位中获得完全不同的功能位置。
谷禾凭借积累的海量肠道菌群样本,深度提取菌群构成结构中隐含的信息,从不同的健康轴洞察普雷沃氏菌的健康影响。基于健康轴和菌群结构,我们将全面量化普雷沃氏菌的个性化干预策略,让菌群调整更精准。
相关阅读:
肠道重要基石菌属——普雷沃氏菌属 Prevotella
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
主要参考文献
向上滑动阅览
Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75:10–45.
Dammeijer F, et al. The PD-1/PD-L1-checkpoint restrains T cell immunity in tumor-draining lymph nodes. Cancer Cell. 2020;38:685–700.e8.
Lu Z, Tang D. The dual roles of Prevotella in gastrointestinal tumorigenesis: from molecular mechanisms to therapeutic prospects. Frontiers in Oncology. 2026;16:1855577.
Wong CC, Yu J. Gut microbiota in colorectal cancer development and therapy. Nat Rev Clin Oncol. 2023;20:429–52.
Tett A, et al. Prevotella diversity, niches and interactions with the human host. Nat Rev Microbiol. 2021;19:585–99.
Fehlner-Peach H, et al. Distinct polysaccharide utilization profiles of human intestinal Prevotella copri isolates. Cell Host Microbe. 2019;26:680–690.e5.
Gálvez EJC, et al. Distinct Polysaccharide Utilization Determines Interspecies Competition between Intestinal Prevotella spp. Cell Host Microbe. 2020;28:838–852.e6.
Larsen JM. The immune response to Prevotella bacteria in chronic inflammatory disease. Immunology. 2017;151:363–74.
Hao QY, et al. Prevotella copri promotes vascular calcification via lipopolysaccharide through activation of NF-kB signaling pathway. Gut Microbes. 2024;16:2351532.
Tannahill GM, et al. Succinate is an inflammatory signal that induces IL-1b through HIF-1a. Nature. 2013;496:238–42.
Urra H, et al. Endoplasmic reticulum stress and the hallmarks of cancer. Trends Cancer. 2016;2:252–62.
Gur C, et al. Binding of the Fap2 protein of Fusobacterium nucleatum to human inhibitory receptor TIGIT protects tumors from immune cell attack. Immunity. 2015;42:344–55.
Lo CH, et al. Enrichment of Prevotella intermedia in human colorectal cancer and its additive effects with Fusobacterium nucleatum on the Malignant transformation of colorectal adenomas. J Biomed Sci. 2022;29:88.
Cogrossi LL, et al. Microbiome modulation uncouples efficacy and toxicity induced by immune checkpoint blockade in mouse multiple myeloma. Nat Commun. 2025;16:65312.
Furusawa Y, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature. 2013;504:446–50.
谷禾健康
什么是慢性疲劳?
疲劳是身体向我们发出的信号,表明我们需要休息和恢复体力。这种疲劳通常发生在剧烈运动后或睡眠不足时。通常情况下,我们可以通过增加睡眠时间、让身体在运动后得到恢复、保持健康的饮食习惯以及减少压力来缓解疲劳。
但是,如果你即使睡了一晚上,并且戒掉了糖分摄入后仍然感到疲惫不堪,那么疲劳就可能变成了慢性问题。
患有慢性疲劳的人不仅身体疲惫无力,还会缺乏完成日常任务的动力,无法集中注意力,甚至可能会感到轻微的抑郁情绪。
贫血
贫血的主要症状是疲劳。贫血可能由多种原因引起,但常见的三种营养因素包括铁、维生素B12和叶酸(维生素B9)的缺乏。
疲劳最常见的原因之一就是缺铁。实际上,缺铁是全球范围内最常见的营养缺乏现象。人体中的大部分铁都存在于血红蛋白中,血红蛋白有助于将氧气输送到细胞,而细胞则利用氧气来产生能量。
铁含量低可能由以下原因引起:
血液检测:由于血液中的铁含量每天都会有所波动,并且在摄入富含铁的食物后会有所增加,因此建议进行铁蛋白检测。如果长期的调理铁,还要做肠道菌群的评估。
维生素B12缺乏
像铁一样,维生素B12也是制造红细胞所必需的成分,因此它是产生能量的关键营养素。此外,维生素B12在制造 DNA方面也起着重要作用,同时它对于大脑和神经系统的正常运作也是不可或缺的。
维生素B12缺乏可能需要数年时间才会显现出来,因为肝脏中有储存大量的维生素B12的能力。
容易出现维生素 B12 缺乏的人群包括:
叶酸(维生素 B9)缺乏
叶酸是另一种对生成红细胞至关重要的维生素。它对于过程也是必需的。
叶酸缺乏通常发生在那些摄入水果和蔬菜不足的人身上。酗酒者以及哺乳期母亲也更容易出现叶酸缺乏的问题。
甲状腺功能低下(甲状腺功能减退)
患有甲状腺功能减退症的人会感到疲劳、难以减肥、出现脱发现象,并且对寒冷非常敏感。
大约 90%的甲状腺功能减退病例是由一种名为桥本氏甲状腺炎的自体疾病引起的。
编辑
如果有甲状腺功能减退的症状,医生通常会先检测患者的促甲状腺激素水平。促甲状腺激素是一种促使甲状腺分泌甲状腺激素的激素。还可能检测游离 T3 和游离 T4的水平。
如果需要的话,还会检查甲状腺抗体水平:甲状腺过氧化物酶抗体(TPOAbs)和甲状腺球蛋白抗体(TgAbs)。超过90%的桥本病患者检测出 TPOAbs 阳性,而大约大于70%的患者检测出 TgAbs 阳性。
维生素D缺乏
除了缺铁之外,最常见的营养缺乏之一是维生素 D 缺乏。全球有近十亿人受到这种状况的影响。由于阳光照射与皮肤癌和皮肤损伤之间的关联,人们大大减少了在阳光下停留的时间。不过,因为阳光照射能够满足人体 50-90%的维生素 D 需求,所以还是有必要进行适量的阳光照射。
只有少数食物天然含有维生素 D,而强化食品则不太可能满足全额的日常需求。
许多研究也表明,维生素 D 缺乏与疲劳症状有关。补充维生素 D 能够改善健康人群以及各种疾病患者的疲劳症状。
肠道微生物群
肠道微生物群在疲劳和慢性疲劳综合征中扮演着重要角色,肠道微生物群可以帮助产生重要的神经递质,维持肠道屏障完整性,防止炎症物质进入血液。在慢性疲劳综合征患者中,研究发现产丁酸盐菌明显减少,这可能与症状严重程度相关。
对慢性疲劳综合征患者进行的干预主要集中在使用双歧杆菌和乳酸菌菌株上,这些菌株在减少炎症和氧化应激方面始终表现出良好的效果,并且伴随着疲劳感的降低。例如,在8周内使用干酪乳杆菌菌株Shirota的益生菌治疗可显著降低慢性疲劳综合征(ME/CFS)患者的炎症标志物。
编辑
doi.org/10.3390/nu16111545
肝功能严重受损
肝脏负责帮助消化、解毒药物和化学物质、合成蛋白质,以及储存铁、维生素 A 和 B12 等营养物质。肝脏在维持人体能量水平方面起着至关重要的作用,而疲劳则是慢性肝病患者常见的症状之一。
睾酮水平低
睾酮是一种对维持高能量水平至关重要的激素,不仅对男性如此,对女性也是如此。睾酮水平较低的人最常见的抱怨就是缺乏能量和动力。
不幸的是,男性和女性的睾酮水平在 20 多岁达到高峰后,每年会下降 1-2%。
减轻压力
压力和疲劳之间存在着密切的关联,它们经常同时出现,并且会相互影响。生活中的压力不仅可能导致创伤后应激障碍,还可能引发慢性疲劳综合症。
多项研究指出,认知行为疗法在压力管理方面能够有效减轻慢性疲劳综合症、纤维肌痛症和多发性硬化症引起的疲劳感。同样,将认知行为疗法与正念冥想相结合使用,也有助于缓解纤维肌痛症和癌症患者出现的疲劳症状。
编辑
研究表明,通过呼吸练习和肌肉放松练习来进行放松疗法,对于缓解慢性疲劳综合症、多发性硬化症、癌症、心力衰竭以及干细胞移植等疾病的疲劳症状有一定的帮助。不过,在那些同时比较了这两种疗法的研究中,认知行为疗法表现得更为有效。
提高睡眠质量
睡眠对保持健康至关重要。如果无法获得足够且高质量的睡眠,就会引发疲劳以及其他多种健康问题。从事夜班工作或夜间工作的人(如医疗专业人员)更容易出现睡眠障碍和疲劳现象。
在患有慢性疲劳综合症、癌症、多发性硬化症、炎症性肠病以及过敏性鼻炎等疾病的人群中,睡眠障碍非常常见。而这些症状往往会进一步加重患者的疲劳感。
编辑
一些临床研究表明,针对睡眠障碍的治疗可能有助于缓解由某些疾病引起的疲劳症状,例如癌症和多发性硬化症。此外,认知行为疗法也被认为能够改善慢性疲劳综合征患者的睡眠质量。
吃出好睡眠:基于肠道菌群的营养干预落地方案
锻炼
久坐不动的生活方式是导致持续疲劳的常见原因。多项研究指出,增加锻炼量有助于减轻健康人的疲劳感。然而,在一项针对中老年人进行的调查中,人们最常给出的不锻炼的理由却是“太累了”。
患有慢性疲劳综合症的人特别难以满足身体活动的要求。根据一项荟萃分析,对于这类患者来说,定期进行体育锻炼有助于减轻疲劳感,其效果甚至优于健康人群。
然而,过度锻炼会导致疲劳以及多种健康问题。专家建议进行适度的运动,比如快走、游泳或骑自行车。
无法坚持运动?解密肠道菌群影响运动积极性
保持水分状态
即使是很轻微脱水的情况,也会使健康人的精神疲劳加剧,同时降低运动员的体力和认知功能。
根据多项临床试验的结果,重新补充水分有助于缓解疲劳症状;而保持充足的水分摄入则可以预防疲劳的发生。
按摩
一些临床试验表明,按摩可以有效减轻运动后局部的肌肉疲劳和酸痛感。不过,冷水浸泡似乎对缓解整体疲劳更为有效。
一项小型临床试验发现,将按摩椅与脑按摩相结合的方法能够有效减轻精神疲劳并改善认知功能。
一项荟萃分析表明,按摩疗法,尤其是肌筋膜释放疗法,能够减轻纤维肌痛患者的疲劳感。在一项针对患有这种疾病的女性的临床试验中,按摩疗法与体育锻炼结合使用时,其效果更为显著。
虽然另一项荟萃分析表明,按摩疗法在减轻乳腺癌患者的疲劳感方面是有效的,但由于大多数研究的质量较低且样本量较小,因此缺乏足够的证据来支持按摩疗法用于缓解与癌症相关的疲劳症状。
注:还有一些有限的证据表明,按摩可能有助于缓解慢性疲劳综合症、类风湿性关节炎、多发性硬化症、腰痛、血液透析、脊髓损伤、骨髓移植以及帕金森病引起的疲劳。
寒冷暴露
多项研究指出,在运动前进行冷水浸泡有助于提高运动表现。在运动过程中,仅通过外部降温措施(例如穿着降温衣物)就能有效减少无氧运动带来的疲劳感;而同时采用外部和内部降温措施(例如饮用冷饮料)则能显著提升有氧运动的表现。
同样,多项研究表明,在运动后接触寒冷环境可以缩短 48 至 72 小时内的疲劳感。全身浸入冷水中似乎比接受冷冻疗法更为有效。
阳光照射
许多研究指出,维生素 D 缺乏与疲劳和肌肉无力有关,不过并非所有有这种缺乏症状的人都会出现这些症状。
适量的阳光照射是补充维生素 D 的最佳方式,因为人体所需维生素 D 的 50-90%可以通过阳光摄取获得。此外,你还可以通过食用富含维生素 D 的食物来补充这种维生素,比如富含脂肪的鱼类、肝脏、蛋黄以及乳制品。
维生素D怎么补更有效?结合肠道的吸收、利用、搭配的科学指南
针灸
针灸主要用于治疗慢性疲劳综合症、癌症(尤其是乳腺癌)以及纤维肌痛症引起的疲劳症状。多项荟萃分析表明,针灸可能具有一定的疗效,但同时也指出大多数研究的质量较低。
编辑
有限的证据表明,针灸可能有助于缓解由失眠、帕金森病、多发性硬化症、骨关节炎以及终末期肾病等疾病引起的疲劳症状。
芳香疗法(薰衣草香味)
在一些临床试验中,使用薰衣草精油进行芳香疗法可以减轻血液透析带来的疲劳和焦虑感。不过,并非所有临床试验都证实了这一效果。此外,薰衣草的香气还能缓解那些在需要应对焦虑任务的健康人群的不适感。
脊椎按摩疗法
在 3 项小型试验中,发现脊椎矫正疗法能够减少纤维肌痛和腰痛引起的疲劳感。
充足的卡路里摄入
卡路里是衡量食物所提供的能量的数量,而身体正是利用这些能量来维持各项功能的运转。多项研究表明,严重的卡路里限制不仅会导致体重下降,还会引发精神和身体的疲劳。重要的是,极低的食物摄入量会增加营养缺乏的风险。
平均而言,成年人每天需要 大约2000 卡路里的能量,不过这一数值会因年龄、性别或体力活动情况而有所不同。据估计,15 至 18 岁的男性每天大约需要 3000 卡路里的能量。如果摄入的卡路里少于 1200 卡路里,可能会导致新陈代谢速度减缓,进而引发疲劳。
有趣的是,一项关于重量举运动员的研究发现,当他们的蛋白质含量较高时,低热量饮食能够减少疲劳、压力以及不满感。
咖啡
对 21 项荟萃分析进行的全面临床研究结果表明,咖啡因能够改善多种运动任务的表现,其部分原因在于咖啡因具有抗疲劳的作用。
当咖啡因能够延缓疲劳时,身体的肌肉就能更有力地收缩,从而让人们能够进行更长时间的锻炼。像跑步、慢跑、有氧健身、游泳和骑自行车等有氧运动,从增加训练量中获益最大。
咖啡因还可以提高警觉性,同时减少精神疲劳,尤其是对那些睡眠不足的人来说更为有效。多项研究指出,饮用含咖啡因的饮料后,人们在进行需要高度集中注意力的任务时,疲劳感会减轻。不过,经常摄入咖啡因的人似乎会逐渐产生对咖啡因作用的耐受性。
咖啡、肠道与健康:深入了解咖啡对肠道菌群的调节作用
减少精制碳水化合物的摄入
摄入碳水化合物后,血液中的葡萄糖水平会迅速上升,随后由于胰岛素的释放,葡萄糖水平会急剧下降。当食用含糖饮料、烘焙食品、糖果、白面包和米饭等食物时,这种效应尤为明显且迅速。多项研究指出,频繁摄入这些食品会导致精神和身体上的疲劳。
充足的铁摄入
多项研究指出,铁缺乏(未伴有贫血)会导致疲劳加剧,以及整体健康状况下降。
富含铁的食物包括肉类、禽肉、内脏肉、鱼类、贝类、豆类、种子、绿叶蔬菜,以及强化食品。
充足的维生素 B12/钴胺素摄入
维生素 B12常见来源包括动物制品,如红肉、鱼类、禽肉、酸奶和牛奶。
摄入足够的维生素 B9/叶酸
“叶酸”这个名称来源于拉丁语“folium”,意为“叶子”。因为叶酸主要存在于菠菜、西兰花、卷心菜和羽衣甘蓝等绿叶蔬菜中。其他富含叶酸的食物还包括柑橘类果汁、豆类以及肝脏。
黑加仑
摄入黑加仑果汁能够减轻健康志愿者在身体和精神上的疲劳感。在一项小型试验中,黑加仑中的花青素也能有效缓解打字工作导致的肩部疲劳和僵硬现象。
编辑
在骑行者中,黑加仑果粉能够减少运动过程中的乳酸积累,并改善休息时的心血管功能。而在登山者中,黑加仑提取物则能够延长攀爬时间和总攀爬时长。
解决食物过敏问题
身心疲劳是人们对食物成分如麸质、乳糖、FODMAPs以及凝集素产生敏感的常见症状。
如果怀疑自己的低能量水平是由于对某些食物的不耐受引起的,建议咨询过敏专家或营养师,进行食物敏感性检测。一般采用排除法饮食疗法,以帮助确定不耐受的原因。
黑巧克力
富含黄酮类的可可和黑巧克力能够被证明能够减轻那些需要持续进行脑力劳动的人以及患有慢性疲劳综合症和多发性硬化症患者的身体和精神疲劳。
肌酸
肌酸是一种在体内自然产生并储存在肌肉中的物质。在体力活动过程中,肌酸会被释放出来,为身体提供所需的能量以维持活动。
多项试验表明,补充肌酸可以有效提高运动表现,并使肌肉疲劳程度减少 14.5%。
肌酸还可以改善认知功能,减少精神疲劳。在那些需要完成需要持续集中注意力的任务或遭受睡眠不足困扰的人群中,肌酸发挥了这样的作用。此外,对于素食者来说,由于他们的饮食中缺乏这种化合物的主要来源,肌酸也有类似的益处。在一项针对老年人的研究中,补充肌酸有助于逆转认知衰退。
辅酶 Q10
在两项针对健康人的临床试验中,口服辅酶 Q10 能够减轻疲劳,并提高体育锻炼时的表现。
有研究指出,定期补充辅酶 Q10 可以有效缓解患有纤维肌痛、多发性硬化、肌肉萎缩以及双相情感障碍等疾病患者的疲劳症状及其他相关症状。
一种口服补充剂,含有辅酶 Q10 和 NADH 成分,能够减轻疲劳,提高慢性疲劳综合症患者的运动表现。
益生菌益生元
对慢性疲劳综合征患者进行的干预主要集中在使用双歧杆菌和乳酸菌菌株上,这些菌株在减少炎症和氧化应激方面始终表现出良好的效果,并且伴随着疲劳感的降低。例如,在8周内使用干酪乳杆菌菌株Shirota的益生菌治疗可显著降低慢性疲劳综合征(ME/CFS)患者的炎症标志物。
使用多菌株益生菌制剂,这些制剂可以对抗抗生素耐药性病原体,增强粘膜屏障并调节免疫反应,包括制剂鼠李糖乳杆菌联合干酪乳杆菌(Ramnoselle) 和干酪乳杆菌联合乳酸双歧杆菌(Cytogenex) 在 8 周后有效改善疲劳(Chadler 评分),这归因于炎症减少,与基线相比,CRP 水平降低了近 30%,免疫力增强,其特征是 IgM 显着增加(是基线值的三倍)和 CD4/CD8 比率降低。
用嗜热链球菌 BT01、短链球菌 BB02、动物芽孢杆菌乳酸亚种 BL03、动物芽孢杆菌亚种 BI04、嗜酸乳杆菌 BA05、植物乳杆菌 BP06、副干酪乳杆菌 BP07 和瑞士乳杆菌 BD08 的八种活菌株和冻干菌株组成的益生菌联盟进行处理 (VSL#3®),与安慰剂相比,4 周后长期COVID患者的Chalder疲劳量表 (CFS)疲劳评分显著降低,安慰剂在干预后维持 4 周。
如果你要补充益生菌 ——益生菌补充、个体化、定植指南
L-肉碱
对于患有慢性疲劳综合症的人来说,连续两周补充 L-肉碱可以改善症状,而且耐受性良好。其衍生的化合物乙酰-L-肉碱和丙酰-L-肉碱也分别对缓解精神和整体疲劳有显著效果。
在老年受试者中,L-肉碱和乙酰-L-肉碱都能有效减轻身体和精神的疲劳感(约减少 40%),增加肌肉质量,并改善认知功能。
一些试验表明,L-肉碱能够有效缓解由纤维肌痛、甲状腺功能减退、肝性脑病、透析相关贫血以及治疗肾癌和丙型肝炎的药物引起的疲劳症状。
虽然 L-肉碱在缓解多发性硬化和癌症患者的疲劳症状方面已被广泛研究,但研究结果并不一致。两项荟萃分析表明,L-肉碱在这两种情况下几乎没有效果或根本无效。
牛磺酸
牛磺酸是一种存在于几乎所有身体组织中的氨基酸,对肌肉的正常功能至关重要。补充牛磺酸可以帮助恢复运动后肌肉中降低的牛磺酸水平。
在患有心力衰竭的患者以及参加短距离自行车运动的运动员中,补充牛磺酸能够减少疲劳并提升身体表现。然而,在另一项针对铁人三项运动员的研究中,牛磺酸并未显示出任何效果。
多项研究指出,将牛磺酸与咖啡因结合使用能够减轻长时间驾驶带来的疲劳感。
人参
在多项针对健康志愿者和慢性疲劳综合征患者的研究中,人参提取物治疗能够减轻疲劳的严重程度。据报道,人参还能减轻癌症和多发性硬化症患者的疲劳感。
编辑
NAD+/NADH
烟酰胺腺嘌呤二核苷酸(NAD+)是一种辅酶,它能够通过将电子从一个分子转移到另一个分子来促进多种代谢反应的发生。
在几项初步试验中,补充这种辅酶或其还原形式 NADH 有助于减轻运动引起的疲劳以及慢性疲劳综合症的症状。当同时补充 NADH 和辅酶 Q10 时,治疗效果更为显著。
关于长寿因子(NAD+)你了解多少?——健康益处及如何提高补充效果
β-丙氨酸
在多项针对不同年龄人群的研究中,β-丙氨酸能够延缓疲劳现象,其效果可达 36.5%。这可能得益于β-丙氨酸能减少高强度无氧运动过程中体内的酸性物质积累。
不过,需要注意的是,这种物质的安全性尚未得到充分验证。此外,在患有慢性疲劳综合症的人群的尿液中检测到了较高水平的这种化合物。目前还不清楚,是否通过补充β-氨基酸来提升血液中的β-氨基酸含量,真的能够引发慢性疲劳综合症。
褪黑素
褪黑素通常在睡前服用,被广泛用于缓解时差症状,如疲劳和睡眠不规律的问题。
在一项针对青少年运动员的临床试验中,运动后在傍晚时分服用褪黑素能够改善疲劳感、睡眠质量、认知表现以及整体健康状况。
褪黑激素对于患有慢性疲劳综合症的人来说通常无效,除非同时伴有这种激素分泌延迟的情况。褪黑素仅能在有睡眠问题的癌症患者中缓解疲劳症状。同样,它也有助于减轻患有创伤性脑损伤或正在接受手术患者的疲劳和睡眠障碍。
褪黑素的产生、功能、干预及其与肠道菌群的关系
支链氨基酸
补充支链氨基酸如亮氨酸、异亮氨酸和缬氨酸,比单纯补充其他氨基酸更能帮助运动后恢复。因为这些氨基酸能够减少肌肉疼痛、损伤以及疲劳感。
它们似乎还能通过补充运动过程中消耗的氨基酸来提高运动表现,不过并非所有研究都认为这种补充方法有效。然而,过量的这些物质会通过增加氨的产生而导致疲劳。
黄芪
在一项针对中风康复患者的临床试验中,口服黄芪补充剂显著改善了患者的疲劳感、认知功能以及生活质量。在一项针对晚期癌症患者的初步研究中,静脉注射黄芪提取物有助于缓解患者的疲劳症状。
一种由黄芪和红艾草提取物制成的制剂,在连续使用 4 周后,能够显著减轻慢性疲劳综合症患者的疲劳症状。这是一种含有黄芪的多味中药配方,能够增强运动员的体力,缩短他们的恢复时间。
D-核糖
一项针对纤维肌痛或慢性疲劳综合症患者的初步研究表明,每天摄入 5 克 D-核糖能够提升 45%的精力水平,并改善 30%的整体健康状况。
据报道,D-核糖还能有效缓解老年人的身体和精神疲劳。
灵芝
在一项针对神经衰弱患者的临床试验中,从灵芝中提取的复合碳水化合物使患者的疲劳感减少了 28%,且耐受性良好。
编辑
同样,灵芝孢子粉能够降低乳腺癌女性的疲劳、焦虑、抑郁症状,同时提升她们的主观幸福感。
5-HTP
在一项针对纤维肌痛症患者的小型临床试验中,给部分患者补充5-羟色氨酸后,有一半患者的疲劳症状及其他相关症状得到了改善。
姜黄素
在一项针对有职业压力相关焦虑与疲劳症状的患者的临床试验中,一种含有高生物利用度的姜黄素和葫芦纤维的组合制剂,其疗效优于传统的姜黄素制剂。
姜黄素与肠道微生物群之间的互作:姜黄素对健康影响的益处
编辑
注:这篇文章仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
谷禾健康
你有没有过这样的体验:紧张时胃里”七上八下”,悲伤时”心如刀绞”,吃到变质食物瞬间反胃,闻到油腻的甜食突然失去胃口?又或者,在某个重要会议前频繁想上厕所,而在专注工作时完全忘了饥饿?
这些日常体验背后,是一套对身体内部状态进行感受、解释和整合的系统,被科学界称为“内在感知”(interoception)。
我们习惯把眼睛、耳朵、鼻子理解为感觉器官,却很少意识到,身体内部同样有一套庞大的感觉网络。
它负责监测身体内部的状态——心率、血压、呼吸、体温、血糖、肠胃的扩张与收缩、炎症信号、微生物代谢产物——并把这些信息源源不断地送往大脑。大脑再据此做出判断:饿了、饱了、恶心、舒服、焦虑、安全。
内在感知其实是大脑持续认识身体的一种方式。大多数时候,你不会清楚感觉到自己的血糖正在被调节…大量内部信息会先在脑干、下丘脑、自主神经和内分泌系统中被自动处理,只有其中一部分最终进入意识,变成我们熟悉的感觉。
所以,“感觉”从来不是大脑凭空制造出来的体验。大脑需要身体不断提供信息,才能知道自己正在管理的是一个怎样的身体。
在所有内脏器官中,肠道是一个尤其特殊的界面。它每天直接面对食物、机械扩张、化学物质、炎症以及复杂的微生态,同时又通过激素、免疫和神经通路不断与大脑交换信息。
编辑
2026 年发表在《Nature》上的一项里程碑式研究表明:衰老过程中肠道菌群的变化会通过一条“微生物—肠道—大脑”通路损害海马体的记忆编码,而恢复迷走神经的感觉输入有可能逆转认知衰退。这项研究与此前一系列证据共同指向一个逐步清晰的结果:肠道的感觉功能,是理解我们如何进食、如何感受、如何记忆,以及如何衰老的关键。
本文将系统梳理内在感知的科学图景和应用前景:它是什么,它的神经元如何连接大脑,肠道为何是内在感知的枢纽,微生物组如何参与感知与记忆,内感知失调如何导致饮食障碍、功能性胃肠病和认知衰退,以及为什么肠道微生态有望成为连接科学、临床与产业的重要桥梁。
我们最熟悉的是视觉、听觉、嗅觉、味觉和触觉。这些感觉有一个共同特点:它们主要帮助神经系统理解外部世界。
比如,眼睛告诉大脑哪里有光,耳朵告诉大脑哪里有声音,皮肤告诉我们哪里受到了压力或高温…
神经科学把这类面向外界的感觉称为外感知(exteroception)。
但一个生命体只知道外面发生什么,显然还不够。我们无法知道自己是否饿了、渴了、累了、发烧了、组织受伤了。因此,神经系统还进化出一整套面向身体内部的监测体系——内感知。
1906年,英国生理学家查尔斯·谢灵顿在《神经系统的整合作用》中,用“内感受”来区分来自身体内部与外部的感觉输入;在当时的分类中,它主要指来自内脏的信号。今天,内感知的含义已经明显扩展,不只包括传统的内脏感觉,也涉及对营养、代谢、温度、炎症、机械状态等身体信息的综合表征。
感觉到一个信号,和“知道自己感觉到了什么”,其实不是一回事
这里需要先区分两个容易混在一起的概念:
感觉(sensation)和 知觉(perception)。
所以,我们最终意识到的“饿”“饱”“痛”“恶心”“舒服”,并不是某一个感受器直接告诉大脑的答案,更像是大脑收到许多数据以后,做出的一次综合判断。
这也意味着,内在感知是否正常,不仅取决于身体有没有发出信号,也取决于神经系统怎样读取和解释这些信号。
编辑
doi.org/10.1016/j.neuron.2025.11.026
大部分身体信息,其实我们意识不到
正常情况下,我们不会时时感到自己的血压、血糖、胃排空速度和肠激素水平正在变化。这些信息大量由脑干、下丘脑、自主神经和内分泌系统自己处理,用于维持血压、体温、水盐平衡、能量状态等基本稳态。
只有当某些信号达到一定强度,或者对行为具有足够重要的意义时,它们才更容易进入主观体验。比如:
所以,内感知首先是一套维持生命稳态的监测系统,其次才成为我们能够明确描述的“感觉”。
而这些感觉最终又会推动行为:饿了去找食物,渴了去喝水,疼痛让人避开损伤,恶心帮助减少继续摄入潜在有害物质。
编辑
“身体内部”和“外部世界”的边界,没有那么清楚
按照定义,外感知感受外界,内感知监测身体内部。但实际上没有那么分工明确。
肠道就是最典型的例子。
从解剖上看,消化道是一条从口腔一直延伸到肛门、与外界相通的管道。肠腔里的食物、细菌和消化液,在拓扑学上仍然位于身体”外部”——它们尚未被吸收进入血液。
但身体不可能把它们当成与自己无关的东西。肠壁上的感受器把这些内容物的化学组成、渗透压、机械张力和微生物代谢物当作内部信号来处理。
肠道是一个把外部世界翻译为内部信号的界面。
味觉也说明了这条边界有多模糊。
食物还在口腔时,TAS1R、TAS2R等受体参与识别甜、鲜、苦等化学特征,这通常属于外感知;而相同或相关的受体也表达在胃肠道部分细胞中,继续参与对已经进入消化道的营养物和化学信息的识别。
于是,一份食物其实经历了两轮不同的“被感觉”:
食物离开口腔后,判断并没有结束。胃肠道还要继续识别营养、机械扩张和潜在危险,并把这些信息传给大脑。
而完成这一步的,正是肠壁上一整套精密的感觉系统。
从感觉的角度看,肠道更像一个由上皮细胞、肠内分泌细胞、免疫细胞、神经网络共同组成的感知界面。
它要完成的事情,可以简单概括成三步:
肠道和舌头,共用一部分“味觉分子”
在舌头上:
注:人类拥有大约25种TAS2R苦味受体,用来识别范围很广的苦味化合物。
有意思的是,这些受体并不只存在于舌头。相同或相关的TAS1R、TAS2R受体也表达在胃肠道的一些细胞,尤其是部分肠内分泌细胞中。
舌头上的受体在肠道,任务发生了变化
例如,肠道中的甜味感受机制可以与葡萄糖感知和GLP-1、GIP等激素释放相联系;而苦味受体检测到某些生物碱、毒素或药物成分后,则可能参与改变胃肠动力、防御和回避反应。
编辑
doi.org/10.1016/j.neuron.2025.11.026
肠道对营养的判断并不只依靠这些“味觉受体”
葡萄糖还有SGLT1等感知和转运机制;脂肪酸可以通过CD36、FFAR1、FFAR4等分子被识别;氨基酸和肽类也有各自的感知通路。
所以说,身体把一部分原本用于识别食物化学性质的分子工具,同时部署在了口腔和肠道。
而把这些糖、脂肪、氨基酸和其他化学信息进一步翻译成激素与神经信号的关键角色,就是接下来要说的肠内分泌细胞(EECs)。
专业延伸|肠道到底有多少种“分子天线”?
如果把肠道的感觉装备展开,会看到一个非常庞大的分子工具箱。
碳水化合物相关感知包括TAS1R2/TAS1R3、SGLT1以及KATP等;
脂肪酸和脂质信号可涉及CD36、FFAR1(GPR40)、FFAR4(GPR120)、FFAR2(GPR43)、FFAR3(GPR41)、GPR119;氨基酸和肽类可以涉及TAS1R1/TAS1R3、CaSR、GPRC6A等;
机械感知涉及PIEZO1/PIEZO2以及感觉神经末梢;
TRPV1、TRPA1参与刺激、炎症和伤害性化学信号;
TLR、NOD1/NOD2负责识别部分微生物结构成分;
AhR可以读取部分菌群色氨酸代谢信号;
FXR、TGR5则参与胆汁酸信息的识别。
肠内分泌细胞:把“吃进来了什么”翻译成身体语言
肠内分泌细胞(EECs)在整个肠上皮细胞中所占的比例并不高,却分布在整个胃肠道,能够检测碳水化合物、脂肪酸、氨基酸、胆汁酸以及其他肠腔信号,再释放不同的激素和信号分子。
比如:
注:
L细胞主要分布于回肠和结肠,在小肠近端也有少量分布。它们可响应碳水化合物、脂肪、蛋白质消化产物及短链脂肪酸等微生物代谢物,分泌GLP-1和PYY。GLP-1可增强葡萄糖依赖性胰岛素分泌、抑制胰高血糖素并延缓胃排空;PYY则参与抑制胃肠动力和食欲。
K细胞主要位于十二指肠和空肠,分泌葡萄糖依赖性促胰岛素多肽(GIP)。GIP可响应葡萄糖、脂肪等营养物质,并促进葡萄糖依赖性胰岛素释放。
胃饥饿素主要由胃底和胃体的P/D1细胞分泌;胰腺ε细胞也可产生胃饥饿素,但在成年人体内数量较少。胃饥饿素通常在餐前和空腹时升高,可刺激食欲并促进生长激素释放。
肠嗜铬细胞(EC细胞)是胃肠道5-羟色胺的主要来源,胃肠道合成的人体5-羟色胺约占全身的90%以上。EC细胞可响应机械刺激、营养物质、炎症信号以及微生物及其代谢物,释放5-羟色胺,参与调节肠道蠕动、分泌和内脏感觉。
编辑
所以,肠内分泌细胞很像一种“翻译器”。
编辑
所以说,大脑不是直接“闻到”肠道里的葡萄糖,而是读取肠道细胞对葡萄糖作出的反应。
肠道不仅知道“吃了什么”,还知道“装了多少”
我们吃一顿饭什么时候应该停止?
如果说只看热量,那么一碗汤和一小块高能量甜点,即使热量相近,对胃造成的机械刺激也完全不同。
因此,胃肠道还有另一套感觉:机械感知。
胃壁撑开、肠道发生牵张和收缩,这些物理变化都会激活机械敏感结构。其中,迷走感觉神经在胃肠壁中形成机械感受末梢,可以读取器官的扩张和张力;PIEZO2等机械敏感离子通道也参与对胃肠扩张的检测。
所以,“胃里装满了”并不是一个单纯的物理状态。胃扩张需要先被转换成神经活动,这样大脑才知道是饱了。
编辑
有些肠道细胞,甚至可以直接连上感觉神经
过去人们常把肠道和大脑之间的交流想象成一个比较缓慢的过程:肠道检测到食物,释放激素;激素进入血液;最后影响大脑。
近年的研究发现,部分肠内分泌细胞可以通过被称为神经足(neuropod)的基底突起,与迷走感觉神经形成突触样连接。
也就是说,某些来自肠腔的营养信息并不需要完全依赖激素进入全身循环,而可以通过局部的细胞-神经连接快速转化为神经信号。
研究表明,突触样连接适合较快速、局部的信息传递,而激素信号则可以产生更持续、更广泛的代谢调节。
这也改变了我们对肠道的理解。它并不只是一个“吃完以后慢慢分泌激素”的器官。其中一部分细胞的功能,更接近真正的感觉转译单元:
肠神经系统——本地处理网络
肠壁内部还有一套复杂的神经网络——肠神经系统(ENS)。它主要由肌间神经丛和黏膜下神经丛组成,可以在局部调节胃肠运动、分泌和血流,也包含能够响应机械和化学变化的神经元。
因此,肠道里的每一次变化都不需要先上传大脑,再等待大脑下命令。
很多事情可以在当地完成:
从信息处理的角度看,肠神经系统更像一个本地网络:先处理一部分肠道信息,再与迷走神经、脊髓感觉通路以及自主神经系统持续交流。
编辑
肠道的信息通过不止一条路进入大脑
至少有三类重要路径共同参与:
其中,迷走传入是目前研究最充分的肠-脑感觉线路之一;脊髓传入则尤其参与机械、痛觉以及部分代谢信号。
研究将肠-脑通信概括为对机械、化学、激素和其他肠道输入的共同整合,由此参与饥饿、饱腹、代谢和稳态调节。
所以,一顿饭进入胃肠以后,身体得到的是一堆信号组合,同时包含:营养成分、体积、机械张力、激素变化以及局部生理状态。
然而,肠内分泌细胞和免疫细胞面对的,并不只有我们吃进去的食物。
肠腔中还有数以万亿计、不断进行代谢活动的微生物。它们自己没有神经,却能够改变肠道感觉细胞所面对的化学环境。那么,微生物又是怎样接入这套内感知系统的?
微生物虽然不能像神经元那样“感觉”,却可能改变人体感觉系统正在读取什么。
微生物不断制造代谢物、释放自身成分,也会改变肠道感觉细胞和神经的状态。所以,菌群参与内感知主要有三个层面:
微生物产生了哪些信号?
肠道微生物会利用我们吃进去的食物继续代谢,产生大量宿主自身不会以同样方式产生的分子。
最典型的是短链脂肪酸 (SCFAs)
膳食纤维进入结肠后,可以被微生物发酵成乙酸、丙酸和丁酸等短链脂肪酸。
短链脂肪酸通过 FFAR2(GPR43)和FFAR3(GPR41)受体被肠上皮细胞、免疫细胞和神经元感知。
次级胆汁酸是另一类重要微生物代谢物
肠道菌群将肝脏合成的初级胆汁酸转化为次级胆汁酸(如脱氧胆酸和石胆酸),后者通过FXR 和 TGR5 受体调节脂质代谢、葡萄糖稳态和肠激素分泌。
另一个重要例子是色氨酸代谢
色氨酸代谢物(吲哚、吲哚丙酸、犬尿氨酸等)由细菌分解膳食色氨酸产生,可激活芳香烃受体(AhR),调节屏障功能和免疫,并与 5-羟色胺合成竞争同一前体,间接影响情绪相关通路。
所以,同样一顿饭进入不同的肠道微生态,最后形成的化学信号并不一定相同。食物是原料,微生物参与了二次加工。人体读取到的除了食物本身,还有这些食物在这个微生态中被加工成了什么。
身体如何识别微生物及其信号?
微生物产生信号之后,还需要有人能够“听见”。
这个“接收端”就是宿主细胞上的各种感受器。
编辑
除了上述微生物代谢物层面,身体还能够识别微生物本身的一些分子特征。例如,TLR(Toll样受体)家族可以响应脂多糖、鞭毛蛋白等微生物相关成分,NOD1、NOD2则能够识别细菌肽聚糖的特定片段。
也就是说,人体不仅能够感知“这里有糖”“这里有脂肪”,还能够在一定程度上判断:这里出现了什么样的微生物信号。
这些受体广泛存在于上皮和免疫系统中,因此微生物组成或活动发生变化时,宿主接收到的免疫信息也会随之改变。
这一步很重要,因为免疫系统本身也是内感知网络的一部分。
一些研究把肠道免疫细胞视为一种感觉中继(sensory relay):它们可以读取微生物抗原和代谢物,再通过细胞因子、局部神经以及其他途径,把肠腔环境的变化转化成宿主内部信号。例如,短链脂肪酸可以通过FFAR2作用于某些免疫细胞。
因此,大脑并不需要直接接触肠腔里的细菌。很多信息在到达神经系统之前,已经先经过了一轮翻译:
微生物或代谢物 → 上皮和免疫细胞识别 → 内分泌、免疫或神经信号。
菌群又怎样改变人体的感觉系统?
如果微生物只是制造一些代谢物,那么它们还只是这套感觉系统里的“信号源”。但实际上它们可以进一步影响负责读取信号的细胞本身。
例如,肠内分泌细胞不仅能感知营养,也可以感知微生物来源的代谢物。研究已经显示,某些细菌色氨酸代谢产物能够被EEC读取,并进一步激活肠神经和迷走通路。
部分EEC还表达TLR5等模式识别受体,可以对细菌鞭毛蛋白作出反应并改变PYY等信号的释放。
肠嗜铬细胞、免疫细胞、肠神经元以及外周感觉神经的兴奋性,也都可能受到微生物及其代谢环境影响。
因为菌群改变的,已经不只是:“肠道里有什么信号。”它还可能改变:“谁在接收这些信号,以及接收得有多敏感。”
同样的营养物、同样的机械刺激,在不同的肠道微生态和免疫状态下,最终进入神经系统的信息强度和性质,都可能有所不同。
于是,菌群和内感知之间的关系,更像一个不断变化的信号网络:饮食改变微生态,微生态改变代谢和免疫环境,代谢和免疫环境又改变肠道感觉细胞与神经的工作状态。
所以,与其说“菌群在感觉”,不如说:菌群正在参与决定,我们的身体能够感觉到什么。
我们通常以为,喜欢一种食物,是因为它好吃。但越来越多的研究发现,食物进入肠道之后产生的信号,也会反过来参与塑造我们对食物的选择。
摄入后的肠道信号,也会强化食物偏好
肠道并不是简单地向大脑报告“有食物进来了”,它能够分辨不同类型的营养输入。
糖、脂肪、蛋白质等进入胃肠道后,会分别被肠上皮、肠内分泌细胞以及感觉神经上的不同分子机制识别;CCK、GLP-1、PYY等肠道激素,再与胃肠扩张等机械信号一起调节迷走传入和脑干、下丘脑中的进食回路。
编辑
doi.org/10.1016/j.neuron.2025.11.026
这种信息甚至可以细化到是什么营养物。
动物研究显示,向胃内直接灌注糖或脂肪,会激活结状神经节(nodose ganglion)中不同的迷走感觉神经元群体;也就是说,肠-脑通路并不是用一个笼统的“热量信号”处理所有营养物。
同时,糖、脂肪和蛋白质等营养物的摄入后信号,还可以降低下丘脑AgRP神经元的活动。AgRP神经元是重要的“饥饿神经元”,在能量不足时活跃,并参与把食物的感官线索与摄入后的营养结果建立联系。
所以,肠道反馈除了吃饱之外,还在参与一个学习过程:某种味道和气味之后,通常会带来什么营养结果。
糖和甜味剂,进入肠道后的信号不同
糖是这套机制里研究得最清楚的例子之一。糖和非营养性甜味剂都可以激活口腔甜味系统,因此在舌头这里它们都可以产生甜。
但进入小肠后,开始分开。
发表在《Nature Neuroscience》的一项小鼠研究发现,十二指肠中的一类神经足细胞(neuropod cells)能够直接与迷走神经形成突触,并区分真正的糖和非营养性甜味剂。
这种区分甚至发生在分子和神经递质层面。
葡萄糖的识别涉及SGLT1等钠-葡萄糖转运机制,随后促使神经足细胞释放谷氨酸;而三氯蔗糖等甜味剂更多通过甜味受体通路,引发以ATP为代表的嘌呤能信号。也就是说,同样是“甜”,肠道细胞向迷走神经发送的却不是同一种信号。
在小鼠中,抑制十二指肠神经足细胞,或者阻断其谷氨酸信号后,动物原本明显的蔗糖优于三氯蔗糖的偏好显著减弱。
这说明,糖的营养强化并不只是因为它在嘴里更甜,而与小肠向大脑发送的快速神经信号有关。
肠道不是在判断“真假”,而是在识别甜味刺激是否同时伴随着可以被吸收、代谢的葡萄糖信号。
糖和脂肪会进入不同的肠-脑奖赏回路
发表在《Cell Metabolism》的研究发现,在小鼠中,向胃肠道直接输入糖和脂肪,会分别激活不同的迷走感觉神经元群体。
这些信号进入中枢后,又分别招募不同的黑质-纹状体多巴胺通路(nigrostriatal dopaminergic pathways),从而形成针对糖或脂肪的营养强化。
这里有两个很重要的信息。
第一,大脑并不是只计算“摄入了多少卡路里”。
它保留了营养物类别的信息。糖是一种信号,脂肪是另一种信号。
第二,当糖和脂肪同时出现时,两条通路可以叠加。
研究中,即使控制热量因素,同时激活糖和脂肪的肠-脑回路,产生的纹状体多巴胺信号和进食强化也强于单独激活其中一条通路。
这为理解为什么高糖+高脂的食物特别容易形成强烈强化,提供了一种神经生理解释:它们并不只是味道更好,还可能同时调动两套相对独立的摄入后奖赏线路。
而且,两种营养物上传大脑的路线也并不完全一致。
现有动物研究提示,肠道脂肪的信息主要依赖迷走传入,而葡萄糖除迷走神经外,还可以通过脊髓感觉传入向中枢报告。
大脑会学习“这个味道后面跟着什么营养”
这些摄入后信号最终还会参与一种非常重要的学习:风味-营养学习(flavor–nutrient learning)。
假设一种新的味道反复与葡萄糖进入肠道同时出现。
最初,大脑可能只知道“这是某种味道”;但随着肠道不断反馈葡萄糖的营养结果,这个味道就逐渐获得了预测意义:闻到或尝到它,大脑就开始预期后面会有能量。
AgRP神经元正参与这一过程。
动物研究显示,营养物到达胃肠道后产生的摄入后信号,是调节AgRP神经元活动的重要因素;而AgRP神经元的活动又参与把外部食物线索与后续营养价值建立关联。
编辑
菌群可能进一步改变这种“营养-奖赏”关系
不同的饮食长期进入肠道,会选择不同的微生物生态;而不同的菌群又会产生不同的短链脂肪酸、胆汁酸衍生物和其他代谢物,并影响EEC、免疫细胞、肠神经和感觉神经的状态。
因此,理论上存在一个持续反馈的过程:
饮食改变菌群,菌群改变肠道信号环境,肠道信号又参与调节饱腹、奖赏和下一次进食。
动物研究已经提供了一些更直接的线索,这种影响可以进一步触及奖赏和选择系统。
动物研究显示,将具有不同觅食策略的野生啮齿动物菌群移植给无菌小鼠后,受体小鼠的自愿饮食偏好也出现差异;另一些研究则证明,微生物来源的代谢物能够通过感觉神经调节纹状体多巴胺和动机行为。
因此,更合理的理解是:菌群可能参与塑造食物偏好的生理背景,而不是单独决定食物偏好。
总的来说,我们想吃什么,取决于多方面因素,舌头对食物的即时评价,肠道对营养后果的反馈,大脑对过去经验的学习,以及微生态对这些身体信号环境的持续影响。
正常情况下,这套系统帮助我们把“想吃”“需要吃”和“已经够了”协调在一起。但如果身体发出的信号变弱、变强,或者大脑对这些信号的解释发生偏差,会发生什么?
下一章节我们来看,内在感知研究的另一个核心问题。
正常情况下,内在感知系统并不需要让我们意识到它的存在。但如果这套系统出现偏差,情况就会不同。
有时是身体发出的信号变弱了,大脑没有得到足够的信息;有时是感觉神经过度敏感,原本普通的刺激被不断放大;还有一些情况下,在大脑对身体信号的整合和解释过程中可能出现问题。
于是,原本用于维持稳态的感觉系统,也可能参与疾病。
进食障碍:饥饿和饱腹信号也可能出现偏差
进食行为看起来是一个主动选择,但它始终建立在身体信号之上。
以神经性厌食症为例,研究显示,患者可出现胃排空延迟、餐后CCK信号增强以及对胃扩张更敏感,少量进食就可能产生明显的饱胀、恶心。
同时,负责整合身体内部状态的岛叶皮层也存在异常,使实际营养不足与主观饥饿感之间出现脱节。长期限制进食又会反过来改变胃肠动力、激素分泌、菌群,形成“进食减少-生理改变-内感知进一步异常”的循环。
神经性贪食症和暴食障碍则可能呈现另一种模式:胃排空加快,对胃扩张和CCK等饱腹信号的迷走反应减弱,使停止进食所需的反馈变得迟钝;反复催吐、泻药使用等行为又会进一步扰乱胃肠反射。
暴食障碍患者常伴有肥胖,而肥胖本身会削弱肠-脑饱腹信号:高脂高糖饮食降低迷走神经对 GLP-1、CCK 的敏感性,菌群失调引发的低度炎症干扰下丘脑和脑干整合。
这种异常并不局限于胃肠道。
进食障碍研究中还常观察到内感知准确性下降:患者不仅较难判断心跳等内部信号,对饥饿、饱腹与情绪状态的区分也可能更加困难。
功能性胃肠病:为什么正常的肠道信号会变成不适?
在功能性胃肠疾病中,肠易激综合征(IBS)和功能性消化不良(FD)是最典型的代表。现在,这类疾病越来越多被归入“肠-脑互动障碍(DGBI)”,问题往往涉及肠道感觉、免疫、神经和大脑加工的共同异常。
其中,内脏高敏感是理解 IBS 和部分 FD 症状的重要机制之一。同样程度的肠道扩张,在内脏高敏感患者身上更容易产生腹痛、腹胀和明显不适。
这种高敏感可以从肠壁开始
动物实验通路:肠道代谢物异戊酸(isovalerate)可以激活肠嗜铬细胞上的OLFR558,促进5-羟色胺释放;随后,黏膜感觉传入对肠道扩张变得更加敏感。抑制肠嗜铬细胞后,这种内脏高敏感可以减弱。
免疫系统也参与放大信号
肥大细胞释放的组胺可以使内脏感觉神经敏化;与此同时,支配结肠的部分TRPV1⁺背根神经节神经元表达机械感受通道PIEZO2,在IBS动物模型中参与把结肠扩张转化为过强的疼痛反应。
就是说,同样的机械刺激,经过微生物代谢物、5-HT、组胺和感觉神经兴奋性的共同调节,最终产生的神经输出可以完全不同。
编辑
异常还会继续向上传递
研究显示,持续的内脏刺激可伴随脊髓、脑干敏化,以及岛叶、前扣带回、杏仁核等区域对疼痛和不适信号加工的改变;下行疼痛抑制也可能减弱。
压力则通过另一方向加入这套回路。
因此,肠-脑互动障碍中的症状并不一定意味着肠道受到的刺激更强,也可能是微生态、免疫和感觉神经共同改变了内脏信号的编码与放大方式。
衰老与认知衰退:当肠道传给大脑的感觉输入变弱
如果说前面的肠-脑互动障碍更像是内脏信号被过度放大,那么衰老可能出现另一种情况:感觉输入本身变弱。
《Nature》研究发现,小鼠随年龄增长,肠道菌群组成和功能发生变化,其中 Parabacteroides goldsteinii增多,并伴随中链脂肪酸(MCFAs)积累。
进一步实验显示,P. goldsteinii 培养上清中富集的 3-羟基辛酸(3-HOA) 等小分子可以复制部分认知损伤,提示关键是其产生的代谢信号发生了变化。
从代谢物到迷走神经,中间隔着免疫系统
这些中链脂肪酸会激活主要表达在巨噬细胞、单核细胞和中性粒细胞上的GPR84,促进 TNF、IL-1β等炎症信号。
值得注意的是,研究观察到的炎症主要集中在胃肠道及相关外周组织,而不是先出现广泛脑内炎症。
接下来受影响的是迷走感觉神经。
携带老龄相关菌群的年轻小鼠在接受肠道营养刺激时,结状神经节中响应的迷走神经元数量减少、反应幅度下降;实验性抑制 PHOX2B⁺TRPV1⁺迷走感觉神经元,也会造成海马新异反应减弱和记忆受损,而破坏相应的脊髓传入并没有产生同样效果。
编辑
感觉通路受损,而非肠道信号缺失
研究者还从不同位置干预了这条通路。
针对相关肠道细菌的噬菌体可以降低 MCFA 水平;敲除或抑制 GPR84 可以减轻认知损伤;而使用 CCK、GLP-1 刺激迷走感觉通路,则能恢复部分海马反应和记忆表现。
一个很关键的发现是:衰老过程中 CCK 和 GLP-1 本身并没有明显减少。也就是说,问题不一定出在“肠道没有发出信号”,而可能出在感觉神经对信号的响应能力下降。
因此,总的来说,认知功能的变化,不一定全部起源于大脑内部。外周微生态和免疫环境,也可能通过改变身体向大脑发送的感觉输入,间接影响脑功能。
我们的身体感受发生在当下,但大脑读取到的,未必完全是一个“只属于今天”的身体。
肠道菌群具有很强的可塑性:一次感染、用药,都可能让群落发生变化。但它同时又具有历史依赖性——扰动结束之后,微生态并不一定完全回到原点。过去长期的饮食、药物和生活环境,可以在今天的菌群中留下持续的生态痕迹。
长期饮食和生活环境,会不断重新筛选菌群
2018 年《Cell》研究比较了生活在泰国和美国的苗族、克伦族人群,并追踪了部分移民。研究发现,迁居美国后,肠道菌群的多样性和部分功能迅速发生变化,植物纤维降解相关能力减少;而且这种“西方化”趋势会随着在美国居住时间增加而加深,并可跨代累积。
编辑
doi: 10.1016/j.cell.2018.10.029
菌群保存的是,事件留下的生态后果
菌群不会保存某一顿饭、某一次焦虑或某段生活的具体内容,它没有神经元意义上的情景记忆。
更准确地说,是过去的环境通过反复的生态选择,改变了哪些微生物能够留下、哪些功能被保留,以及整个群落更倾向于产生怎样的代谢环境。
因此,菌群更像一份生态档案,过去形成的菌群状态仍在今天继续代谢食物、改造胆汁酸、产生微生物代谢物,并影响上皮、免疫和感觉神经。
这正是它与内感知发生联系的地方。
过去的生态痕迹,可以进入今天的内感知
我们前面讲到的,2026 年《Nature》的衰老研究把这件事展示得尤其具体。随着小鼠年龄增长,菌群的物种组成和微生物基因功能都发生系统性改变,其中P. goldsteinii随年龄增加;这种老龄相关微生态状态可以通过共居和菌群移植转移到年轻小鼠,并影响它们的认知表现。
编辑
从身体感觉,到“我是谁”
神经科学家 Antonio Damasio 曾把自我区分为不同层次:
从这个角度看,“自我”并不完全从思想和记忆开始。在我们能够回答“我是谁”之前,大脑其实一直在处理另一个更基础的问题:
“我的身体现在怎么样?”
心跳快还是慢,呼吸是否顺畅,胃里是空还是满,身体是轻松还是紧绷,有没有疼痛、恶心、疲劳或其他内部变化——这些信息经过脑干、岛叶以及其他脑区不断整合,共同构成了我们对“此刻的自己”的身体背景。
这也解释了为什么,当内感知发生明显改变时,受到影响的有时不只是某一种身体感觉。
这些现象背后的机制远比单一脑区复杂,但它们至少提示了一点:稳定的自我体验,本身就与大脑持续获得和整合身体信息有关。
肠道,正是这套身体信息的重要来源之一。进食后的机械扩张、营养信号、肠激素、免疫状态以及微生物产生或改造的代谢物,都可能参与塑造大脑正在读取的“身体背景”。
所以,关注饥饿、饱腹、胃肠不适、压力下的身体变化,更深一层,它是在学习分辨:身体正在告诉我什么,而我又是怎样感觉到自己的。
这也让接下来的实践有了更明确的意义,这条从身体信号产生、被感知、被传递,到最终被大脑解释的信息链需要尽可能保持稳定和清晰。
讲到这里,一个很自然的问题是:既然肠道、菌群、免疫和感觉神经共同参与内感知,我们能做什么来维护这套系统?
首先需要明确,目标并不是让身体越敏感越好。前面章节我们已经看到,感觉信号过度放大可以表现为内脏高敏感,反应过弱又可能造成身体信息上传不足。更理想的状态是:信号来源稳定、接收不过度、神经传递保持适当增益,大脑能够区分和解释这些身体信息。
先让饥饿和饱腹信号变得清晰
一顿饭进入胃肠道后,大脑并不是等到“胃装满了”才知道该停下来。维护内感知的第一步,是尽量保留 “饿—吃—饱” 之间清晰的身体变化。
长期不停吃零食、边工作边无意识进食,或者习惯性吃到非常撑,都会让我们越来越少注意餐前饥饿和餐后饱腹之间的差别。
实践上更值得做的是:减少持续性的无意识进食,避免把“明显过饱”当成一顿饭正常结束的标准,也给胃肠和大脑一点时间完成饱腹反馈。细嚼慢咽,别在信号传给大脑之前就吃完了。
并不意味着所有人都必须严格三餐,重点是:
给每一次进食留下相对明确的开始和结束,让身体状态有机会被区分。
维护感觉系统运行的生理背景
压力正是影响这套背景的重要因素。HPA 轴和交感神经可以改变胃肠动力、肠道通透性和免疫反应,并进一步影响肠道感觉状态。
比如避免忙到白天不吃、晚上集中暴食,或者压力一大就持续吃高糖高脂食物。稳定的进食节律,本身就在给肠道提供更清晰的营养和饱腹信号。
例如工作结束后短暂步行、缓慢呼吸,或安静休息几分钟,再进入进食或睡眠,避免身体长期停留在“持续应激”的状态。
压力之后是否更容易腹胀、腹泻、便秘、反酸或食欲异常?这种重复出现的模式,本身就是重要的内感知信息,也能帮助我们更早识别身体的应激反应。
如果胃肠道症状长期与焦虑、压力高度同步,可进一步评估脑-肠互动,而不是简单归因于“肠胃不好”或“想太多”。
运动还能加速胃排空,并在某些情况下降低结肠癌风险。这种关系可能是双向的。临床前研究表明,特定肠道菌群模式可通过影响大脑中与运动相关的区域而改变运动表现。
例如,细菌产生的脂肪酸酰胺可激活肠神经系统中的内源性大麻素受体,增强运动过程中的神经元活动,并通过多巴胺通路提升运动能力。这提示存在一个正向反馈循环:运动促进肠道健康,而健康的肠道又可能提高运动的意愿和表现。
编辑
doi.org/10.1016/j.neuron.2025.11.026
重新学习区分:饿、饱、不适,还是情绪?
很多身体感觉本来就不是泾渭分明的。饥饿可能表现为胃部空虚,也可能只是注意力下降…因此,需要建立自己的“刺激-身体反应”对应关系。
同时,也可以观察某些食物、睡眠不足或压力是否总与同一种胃肠反应同时出现。主要是提高内感知的分辨率——逐渐知道哪些只是短暂波动,哪些信号要回应,哪些在反复提示同一个问题。
菌群:你给它什么底物,它产生什么
饮食提供底物 → 菌群代谢能力被调用 → 肠腔化学环境改变 → 宿主接收到的信号改变。
对于没有明显胃肠症状的人,更实际的做法不是追逐某一种“明星益生菌”,而是让菌群长期面对更多样的底物来源。例如:
重点在于持续提供不同类型的碳水化合物、植物化学物和其他微生物可利用底物,让菌群维持较丰富的代谢空间。
但“增加底物”并不意味着纤维越多越好。
对 IBS 来说,关键是吃对纤维
对于容易腹胀、腹痛的人,一次大量增加麦麸、粗粮、豆类等高度发酵食物,可能反而增加肠腔产气和扩张。肠道本身如果已经存在内脏高敏感,同样程度的扩张也可能产生更明显的不适。
因此,IBS 人群更强调类型和耐受量。
目前更支持可溶性纤维,例如燕麦和车前子壳等尤其对于以便秘为主的 IBS,可以从较低量开始,逐渐增加,根据腹胀和排便反应调整。
如果腹胀、腹痛、排便异常仍然明显,则可以在专业指导下尝试低FODMAP饮食。
注:FODMAP 指一组容易在小肠吸收不完全、又容易被肠道微生物发酵的短链碳水化合物。常见来源包括部分乳制品中的乳糖、小麦和洋葱、大蒜中的果聚糖,豆类中的低聚半乳糖,以及部分水果和代糖中的果糖或多元醇。
对于部分 IBS 患者,减少这些底物进入肠道,可以降低渗透负荷和快速发酵造成的气体生成,从而减轻腹胀、腹痛和排便异常。
低FODMAP 不是长期戒掉所有发酵食物
比较规范的做法通常分为三个阶段:
短期限制(约 2-6 周)
→ 分组重新引入 FODMAP 食物
→ 找到个人能够耐受的种类和剂量,形成长期个体化饮食。
很多高 FODMAP 食物同时也是菌群重要的发酵底物,长期过度限制不仅会使饮食越来越单一,也可能减少部分具有益生元作用的底物。因此,它真正的目的是找出个体肠道对什么敏感,以及敏感到什么剂量。
在 IBS 内部,策略也不完全相同
因此,饮食真正需要追求的不是理论上的“最健康”,而是在营养充分和食物多样性的基础上,逐渐找到自己的微生态能够利用、自己的肠道又能够耐受的饮食结构。
身体对食物的实际反应,本身就是需要读取的一条内在感知信息。
菌群检测,如何帮助了解“内感知信号”?
以肠道菌群检测中常见的功能指标为例,短链脂肪酸就是其中非常典型的一类。报告可以从菌群及其功能信息中评估丁酸、丙酸、乙酸等相关代谢能力。
编辑
<来源:谷禾肠道菌群检测数据库>
对内感知系统来说,这些分子的意义并不只是“有益代谢物”:宿主可以通过 FFAR2、FFAR3 等受体读取短链脂肪酸信号,进一步影响肠内分泌、免疫和屏障功能。
谷禾肠道菌群检测报告中可以看到色氨酸、吲哚,以及部分神经递质相关指标。肠道菌群能够改变色氨酸进入不同代谢路径的比例,其中部分吲哚类代谢物可以通过 AhR等受体作用于肠上皮和免疫系统;而肠道 5-HT等信号又参与胃肠动力和感觉调节。
这些指标帮助我们观察,菌群是否可能正在改变一组能够影响肠道感觉环境的化学信号。
例如,一份菌群报告同时提示色氨酸、GABA 和谷氨酸相关功能偏低,而多巴胺相关功能偏高。
色氨酸并不只有制造血清素这一条去路。它还可以进入犬尿氨酸通路,也可以被肠道微生物转化成不同的吲哚类代谢物;其中一些分子能够通过 AhR 等受体作用于肠上皮和免疫细胞。
GABA 和谷氨酸这两类分子都参与神经活动,但这里的偏低不能理解成脑内 GABA 或谷氨酸不足。更值得关注的是,它们提示菌群参与局部神经活性分子生成和转化的能力可能发生了改变。
肠神经系统、肠内分泌细胞和感觉神经都生活在这样的化学环境里。于是我们可以继续提出一个假设:
如果局部神经活性信号发生改变,这个人对胃肠道内部变化的“读取方式”,会不会也跟着改变?可能表现在哪里?
有的人可能会发现,自己并不是“肚子痛得很厉害”,而是身体信号变得不够清楚。
比如:
吃饭前很难判断自己到底饿不饿;
明明已经吃了不少,却没有很清晰的饱腹感;
或者相反,一点点胃肠扩张就觉得明显不舒服。
再看多巴胺相关功能偏高,与此同时 DOPAC 等后续代谢相关指标又偏低,那是不是生成、利用和后续代谢之间是否出现了不对称?
这个人会不会更容易出现这样一种体验:
身体真正的饥饿信号并不强,但看到食物、闻到食物,或者处在压力和无聊状态时,却很容易产生“想吃”的冲动。
然后再回头看该检测者的菌群代谢、屏障、炎症、胆汁酸、SCFA、色氨酸通路能不能提供其他相关的解释线索。
如果同时看到 LPS、炎症相关指标升高,我们就要进一步考虑:是不是存在一个更偏炎症性的宿主环境,使感觉神经的阈值发生改变。
如果胆汁酸转化相关功能异常,又伴随餐后腹泻或明显胃肠反应,则可以继续考虑菌群-胆汁酸-FXR/TGR5-胃肠动力和感觉这条线。
肠上皮、免疫细胞、肠内分泌细胞和感觉神经不断读取身体内部的变化,再通过神经、激素和免疫信号把这些信息送往大脑。大脑把它们与外界环境、过去经验和当下情绪放在一起,最终形成我们主观感受到的——饿、饱、舒服、不适、紧张、安全等。
我们对自己的体验,始终建立在一个真实、不断变化的身体之上。
而肠道又让这件事变得更加复杂。我们吃进去的食物会被菌群再次加工,形成短链脂肪酸、胆汁酸衍生物、色氨酸代谢物以及各种免疫相关信号;这些变化又会被身体读取,成为内在感知信息的一部分。微生物并不会替我们思考,也不会替我们产生情绪,但它们可以改变大脑正在读取怎样的身体背景。
肠道菌群在一定程度上,为我们理解身体内部信号环境提供了微生态线索。只有将这些数据与一个人的真实饮食、排便、饥饿感、饱腹感、压力状态及身体感受结合起来,我们才有可能逐渐看清身体正在传递什么信息,以及该如何回应。
主要参考文献
Adler J, et al. Intestinal interoceptive dysfunction drives age-associated cognitive decline. Nature. 2026. DOI: 10.1038/s41586-026-10191-6.
Steensels S, Depoortere I. Chemoreceptors in the Gut. Annual Review of Physiology. 2018;80:117–141. DOI: 10.1146/annurev-physiol-021317-121332.
Singh P, et al. Vitamin D Supplementation and the Human Gut Microbiota: A Systematic Review. Nutrition Reviews. 2026;84(6):1157–1174. DOI: 10.1093/nutrit/nuaf120.
Bora SA, et al. Influence of Vitamin D3 on the Human Gut Microbiota: Current Status and Controversies. Anticancer Research. 2020;40:551–556.
Bohórquez DV, et al. Neuroepithelial circuit formed by innervation of sensory enteroendocrine cells. Journal of Clinical Investigation. 2015;125(2):782–786.
Kaelberer MM, et al. A gut-brain neural circuit for nutrient sensory transduction. Science. 2018;361(6408):eaat5236.
Williams EK, et al. Sensory neurons that detect stretch and nutrients in the digestive system. Cell. 2016;166(1):209–221.
Bai L, et al. Enteric neurons link the gut with the brain and mediate sugar appetite. Nature. 2022.
谷禾健康
在人类肠道微生物组这个复杂的生态系统中,大多数物种的功能仍属未知。然而,有一株细菌因其在药物代谢、免疫调控和疾病关联中的突出作用,正从”默默无闻”走向”舞台中央”——它就是迟缓埃格特菌(Eggerthella lenta)。
迟缓埃格特菌(Eggerthella lenta)是一种革兰氏阳性、无芽孢、专性厌氧的放线菌,广泛存在于人体肠道中。它是少见的无糖代谢专性厌氧菌,代谢终产物乙酸盐作为碳源,同时主要依赖精氨酸脱亚胺酶途径来产生 ATP 能量。
长期以来,该菌因其能够使心脏药物地高辛失活而闻名。不仅如此,多数研究逐步证实在治疗帕金森病的药物左旋多巴的代谢链中,E.lenta 同样扮演了关键角色,能利用多巴胺脱羟酶(Dadh) 将粪肠球菌产生的多巴胺进一步转化为间酪胺。
这些发现表明,它就像是药物在体内命运的一个“隐形开关”然而,近十年来的研究揭示了E.lenta远超药物代谢的丰富生物学图景:它拥有独特的类固醇代谢能力、多样的植物多酚转化途径、复杂的菌株水平变异,并通过多种代谢产物和细胞组分深度调控宿主免疫系统。
E. lenta在炎症性肠病、类风湿性关节炎、多发性硬化、2型糖尿病、心血管疾病及多种肿瘤中呈现丰度变化,且能在特定条件下“揭竿而起”,成为导致高死亡率血流感染的“机会主义者”。与此同时,该菌也在百岁老人肠道中富集,具有抗菌、抗肿瘤等潜在有益作用。这种“亦敌亦友”的特性使其成为微生物组研究中最引人注目的物种之一。
编辑
近日, 美国加州大学Peter J. Turnbaugh 教授团队在《Nature Reviews Microbiology》(IF=104.6)发表综述,系统汇总迟缓埃格特菌代谢、免疫调控、菌株多样性及微生物编辑干预方案。本文以该综述为主要参考,探讨这一广泛存在却长期被忽视的肠道细菌,如何通过独特的代谢网络影响药物疗效、膳食成分转化及多种慢性疾病进程,并介绍针对该菌的精准干预方向,包括饮食调节、优化药物共给药、噬菌体治疗和 CRISPR 基因组编辑等。
▸ 迟缓埃格特菌的研究历史
迟缓埃格特菌(Eggerthella lenta)的研究历史可追溯至1935年,Eggerth首次从人类粪便中分离出这种革兰氏阳性、无芽孢的厌氧杆菌。
1938年,Prevot将其命名为迟缓真细菌(Eubacterium lentum),后于1999年基于系统发育证据重新分类至新建的埃格特菌属(Eggerthella),定名为Eggerthella lenta。
在随后的数十年中,该菌主要被视为一种低丰度的肠道共生菌,偶尔在菌血症等感染病例中被报道。直到2013年,Turnbaugh实验室在Science上发表里程碑式研究,证明E. lenta能够代谢并灭活强心苷类药物地高辛,且这一能力具有菌株特异性,这才真正点燃了学术界对该菌的研究热情。
此后十余年,随着高通量测序、比较基因组学、代谢组学、无菌动物模型及遗传操作工具的发展,E.lenta 的生物学特征得到迅速揭示。研究发现,该菌不仅含有参与强心苷还原的 Cgr 操纵子,还具备完整的类固醇代谢酶系,包括羟基类固醇脱氢酶(HSDH)、7α-脱水酶和 21-脱羟酶等,可转化胆汁酸和性激素。
2020—2022 年,多项研究阐明了 E. lenta 通过 Cgr2 调控 Th17 细胞活化、促进肠道炎症的机制,并发现其胆汁酸代谢产物可双向调节 T 细胞分化。2022 年,首个针对 E. lenta 的 CRISPR-Cas 基因组编辑工具问世,推动相关研究从描述性关联迈向机制性因果验证。2024—2026 年,研究进一步揭示了该菌参与糖皮质激素向孕激素转化、产生促炎脂质分子,以及其对胰腺癌可能具有的保护作用。
▸ E. lenta值得研究的原因
迟缓埃格特菌(Eggerthella lenta)之所以值得深入研究,至少有以下几方面原因:
• 第一:它在人类肠道中高度流行(约80%以上的健康成人携带),但丰度通常较低(<0.1%),这种”高流行、低丰度”的模式提示其可能发挥着与其数量不成比例的重要调控作用;
• 第二,全身的“机会主义者”:传统上,迟缓埃格特菌感染多与腹腔内感染(如阑尾炎、肠穿孔、肝脓肿)相关,这与其肠道定植的生态位相符。
最新的病例报道:一位78岁的男性糖尿病患者,在Fournier坏疽(一种会阴、生殖器区域的坏死性筋膜炎)手术后出现了脓毒症休克,血培养最终揪出了元凶:迟缓埃格特菌。这个病例警示我们,该菌的感染谱可能比我们想象的更广。
迟缓埃格特菌感染的高危人群:
• 第三:该菌的泛基因组高度开放,菌株间变异显著,不同菌株在药物代谢、免疫激活等方面可能表现出截然相反的表型,这对微生物组研究中”物种水平”的分析范式提出了挑战;
• 第四:E. lenta与数十种疾病存在关联,涵盖自身免疫病、代谢性疾病、心血管疾病、肿瘤和神经系统疾病,是连接肠道菌群与全身健康的重要节点;
• 第五:,该菌已具备遗传操作系统,是微生物组编辑和精准医学的理想靶点。
分类地位
E. lenta在分类学上隶属于:
埃格特菌科包含多个属,除Eggerthella外,还包括Gordonibacter、Slackia、Paraeggerthella、Adlercreutzia、Enterorhabdus等,这些菌在系统发育上关系密切,且普遍具有转化多酚和类固醇的能力。E. lenta的模式菌株为DSM 2243ᵀ(等同ATCC 25559ᵀ),于1935年由Eggerth分离。
形态和培养特征
E. lenta为革兰氏阳性杆菌(但在某些生长条件下或老龄培养物中可呈革兰氏染色不定),大小约为0.2-0.5 μm × 0.8-2.0 μm,不形成芽孢,不运动。
在厌氧条件下生长良好,最适生长温度为37°C。在血琼脂平板上培养48小时后,可形成直径0.5-2.0 mm的圆形、凸起、光滑、不透明的白色至灰色菌落。部分菌株可产生α溶血。
• 精氨酸是调控该菌免疫激活能力的重要物质
该菌生化反应不活泼,不发酵大多数糖类,不产生触酶和氧化酶。其生长严重依赖精氨酸,精氨酸通过精氨酸脱亚胺酶(arginine deiminase, ADI)途径代谢,产生鸟氨酸、氨和ATP。
早期研究表明,精氨酸是E. lenta的生长限制因子,在富含精氨酸的环境中生长显著增强。这一代谢特征后来被证明是调控该菌免疫激活能力的关键靶点。
流行率与人体分布
• 流行率较高但相对丰度较低
E. lenta是人类肠道中流行率最高的细菌之一。对超过168000份样本的整合分析显示,该菌在全球人群中的流行率超过80%。
然而,其相对丰度通常很低,在大多数健康成人中低于肠道菌群的0.1%。这种”高流行、低丰度”的分布模式提示E. lenta可能是一种”关键物种”,通过代谢活性而非数量优势来影响微生态和宿主生理。
• E. lenta主要定殖于人体结肠
E. lenta主要定殖于人类结肠,但在回肠中也可检出。除肠道外,该菌在口腔、女性生殖道中偶有报告。
值得注意的是,尽管该菌在人类肠道中高度流行,但在其他哺乳动物中并不常见。这种“人类特异性”定殖的机制尚不清楚,可能与宿主饮食、肠道生理环境或微生物竞争有关。
埃格特菌科的其他成员则在多种脊椎动物中广泛分布,提示E. lenta可能在进化过程中发生了宿主适应。
基因组特征
• 基因组基本特征
E. lenta模式菌株DSM 2243ᵀ的基因组大小约为3.1 Mb,GC含量约为64%,编码约2,800个蛋白质编码基因。随着菌株分离和测序工作的推进,目前已有数十个E. lenta基因组被测定和比较分析。
E. lenta的泛基因组呈现高度开放的特征。在2020年构建了包含24个菌株的比较基因组学工具箱,发现菌株间存在大量可变基因。最新的研究通过分析更多基因组,将E. lenta划分为两个系统发育亚群,其中一个亚群将越来越大比例的基因组用于移动元件防御,这反映了噬菌体和其他肠道移动元件对该菌施加的强烈选择压力。
• CRISPR-Cas系统与防御机制
E. lenta编码I-C型CRISPR-Cas3系统,这一内源性免疫系统后来被开发为基因组编辑工具。生物信息学分析从CRISPR间隔区中鉴定出13种不同的噬菌体,其中多种频繁受到CRISPR-Cas系统的靶向,表明噬菌体是E. lenta在肠道环境中的主要威胁之一。
除CRISPR系统外,E. lenta的泛基因组至少包含22类不同的防御系统,其中大多数具有菌株可变性。这些防御系统包括限制修饰系统、流产感染系统等,构成了多层防护网络。
• 拥有大量氧化还原酶
E. lenta的代谢多样性很大程度上依赖于其编码的大量氧化还原酶。比较基因组学分析显示,该菌编码多达651个氧化还原相关基因,约占其基因组的四分之一。这些酶利用铁硫簇、黄素、钼喋呤等辅因子,催化从类固醇还原到多酚脱羟基的各种反应。
厌氧呼吸与电子受体利用
E. lenta虽然不发酵糖类,但拥有强大的厌氧呼吸能力。它能够利用多种电子受体进行能量代谢,包括:
• 精氨酸:通过ADI途径,精氨酸不仅作为碳氮源,还可通过精氨酸-鸟氨酸反向转运产生质子动力。
• 有机酸:如乳酸,通过乳酸消旋酶和乳酸利用酶系进行代谢。
• 衣康酸(itaconate):这是一种宿主来源的免疫代谢物,由活化的巨噬细胞产生,具有抗菌活性。E. lenta能够利用衣康酸作为呼吸底物,这一能力由三个基因座(ita1、ita2、ita3)介导,且在该菌中高度保守。
在肺炎小鼠模型中,E. lenta在肺部的丰度与衣康酸浓度相关,提示该菌能够利用宿主炎症代谢物在炎症部位生存。
• 羟基肉桂酸类:如绿原酸、新绿原酸等,通过脱羟基反应转化为相应的儿茶酚衍生物。这种代谢能力可能有助于多酚类化合物的利用,并影响宿主的抗氧化和抗炎反应。
强心苷还原酶系统与地高辛代谢
E. lenta最著名的代谢能力是对强心苷类药物的还原灭活。强心苷是一类结构中含有甾体母核和不饱和内酯环的化合物,包括临床上广泛使用的地高辛(digoxin)和洋地黄毒苷(digitoxin),用于治疗心力衰竭和心房颤动。
2013 年发表于《Science》的研究首次证实,E.lenta 可将地高辛还原为无活性的二氢地高辛,但这一能力具有菌株特异性,仅部分菌株具备该活性。
地高辛治疗窗极窄,有效血药浓度仅为 0.5–2.0 ng/mL;微生物介导的药物灭活可能导致疗效不足。抗生素可暂时改变 E. lenta 的丰度和活性,进而影响地高辛血药浓度。2024 年一项研究进一步发现,肠道放线菌(包括 E. lenta)分泌的 P-糖蛋白 ATP 酶抑制剂可促进药物吸收,表明微生物不仅能直接代谢药物,还可通过调控宿主转运蛋白影响药物作用。
胆汁酸代谢
E. lenta 编码一套在肠道细菌中较为罕见的胆汁酸代谢酶系统。
• E. lenta通过胆汁酸代谢调控肠道免疫
其产生的胆汁酸代谢物不仅参与胆汁酸转化,还可调控宿主免疫反应:异脱氧胆酸(isoDCA)通过法尼酯 X 受体(FXR)影响树突状细胞,并促进调节性 T 细胞(Treg)分化;异石胆酸(isoLCA)和 3-氧代石胆酸(3-oxoLCA)可直接作用于 RORγt,抑制辅助性 T 细胞 17(Th17)分化。isoLCA 进一步转化生成的 isoalloLCA 则可增强线粒体活性氧产生、促进 FOXP3 表达,从而有利于 Treg 形成。
百岁老人肠道中 isoLCA 和 isoalloLCA 水平通常较高。这些代谢物既有助于维持免疫平衡,也能有效抑制艰难梭菌和耐万古霉素肠球菌,可能是其抵御肠道感染的重要因素之一。
植物多酚代谢
E. lenta 在植物多酚的微生物转化中发挥关键作用,尤其参与木脂素和鞣花单宁代谢,并可转化四大类结构各异的多酚化合物。
编辑
• E. lenta转化多酚释放健康潜能
E. lenta能够帮助人体转化多种植物多酚,尤其擅长分解和改造木脂素、鞣花单宁等成分。这些物质广泛存在于亚麻籽、芝麻、全谷物、浆果和核桃等食物中。
E. lenta编码的儿茶酚-O-脱甲基酶(如Demethylenateuteinase A, DmaA)负责将罗汉松脂素等木脂素O-脱甲基化为肠木脂素的前体。肠木脂素(肠二醇和肠内酯)具有弱雌激素活性、抗氧化和抗肿瘤特性。
E. lenta和近缘菌参与将鞣花单宁(存在于浆果、核桃等食物中)转化为尿石素的过程。2025年,研究发现了对映互补的肠道细菌酶,能够以不同立体化学方式代谢膳食多酚。
这表明,膳食和补充剂成分经 E. lenta 等肠道菌代谢后可转化为多种新化合物,其中部分具有弱雌激素、抗氧化和抗炎作用,进而影响人体健康。
氨基酸代谢
E. lenta 的生长和代谢高度依赖氨基酸,尤其是精氨酸。其精氨酸脱亚胺酶(ADI)途径可将精氨酸转化为瓜氨酸和氨,随后生成鸟氨酸和 ATP,从而提供能量、缓冲酸性环境,并为多胺合成提供底物。
此外,E. lenta 还可通过 Stickland 型反应代谢脯氨酸、亮氨酸和苯丙氨酸等多种氨基酸。2025 年研究表明,这类氨基酸发酵在复杂肠道菌群中的作用比此前认识更广泛。
E. lenta 的氨基酸代谢也与宿主免疫直接相关。Alexander 等发现,高精氨酸饮食可抑制 Cgr2 酶活性,阻断 E. lenta 激活 Th17 细胞,从而缓解小鼠结肠炎,为通过膳食氨基酸调控肠道免疫提供了新思路。
强大的类固醇激素代谢
E. lenta具有强大的类固醇转化能力,这在肠道细菌中极为罕见。除前述胆汁酸转化外,该菌还能:将皮质酮等糖皮质激素转化为孕酮等孕激素。这一转化需要与大肠杆菌共培养,利用其产生的氢气。
早期研究表明,E. lenta能够转化多种内源性和合成的性激素,这些激素经历肠肝循环。这一能力对生殖系统疾病的潜在影响正在受到关注。
其他药物和外源物代谢
除地高辛外,E. lenta还参与多种药物和外源化合物的代谢:
• 左旋多巴:在治疗帕金森病的药物左旋多巴的代谢链中,E. lenta 同样扮演了关键角色,能利用多巴胺脱羟酶(Dadh) 将粪肠球菌产生的多巴胺进一步转化为间酪胺。
• 甲氨蝶呤:甲氨蝶呤是一种常用的免疫抑制剂和抗肿瘤药物。甲氨蝶呤影响E. lenta等多种肠道细菌的保守代谢通路,导致宿主免疫激活降低。
• 辛伐他汀:2024年的研究发现,辛伐他汀可诱导E. lenta细胞表面基因的表达,提示药物-微生物互作不仅限于直接代谢。
• 咪唑丙酸:E. lenta参与组氨酸代谢产生咪唑丙酸的过程,该代谢物在2型糖尿病患者中升高,可通过mTORC1通路损害胰岛素信号传导。2025年的研究进一步证实咪唑丙酸是动脉粥样硬化的驱动因子和治疗靶点,并可调节下丘脑活动和应激相关行为。
微生物间互作
E. lenta在肠道中并非孤立存在,而是与其他微生物形成复杂的代谢互作网络。例如:
• 与大肠杆菌的共代谢:E. lenta的21-脱羟酶活性需要与大肠杆菌共培养,大肠杆菌产生的氢气为该反应提供了必要的还原力。这一发现强调了微生物互作在类固醇代谢中的关键作用。
• 木脂素转化的分工协作:在将植物木脂素(如罗汉松脂素)转化为肠木脂素(肠二醇和肠内酯)的过程中,E. lenta负责O-脱甲基化步骤,而其他肠道细菌(如Gordonibacter、Lactonifactor等)参与后续的脱羟基和环化反应。
• 苯乳酸(PLA)对金黄色葡萄球菌的抑制:E.lenta和其他肠道细菌通过Dao酶将饮食中的3,4-二羟基苯乳酸(DOPL)转化为苯乳酸(PLA),后者在体外和体内均能抑制金黄色葡萄球菌的生长和毒力。
• 合成群落中的抗病原菌作用:在艰难梭菌感染模型中,包含E. lenta的合成群落能够抑制艰难梭菌的生长,这与其产生的次级胆汁酸(如DCA)有关。
与免疫系统的相互作用
E. lenta 对宿主免疫的调控是近年来的研究热点。其通过代谢产物和细胞组分调节 T 细胞、B 细胞、树突状细胞及中性粒细胞等多类免疫细胞。
• Th17细胞激活:Cgr2-RORγt通路
Th17细胞是一类表达转录因子RORγt(视黄酸相关孤儿受体γt)并分泌IL-17A的CD4⁺辅助性T细胞,在黏膜防御和自身免疫病中发挥关键作用。2022年在Cell Host & Microbe上发表的研究揭示了E.lenta激活Th17细胞的分子机制:
编辑
这一发现的重要意义在于:它首次证明了一种肠道细菌的单个代谢酶可以直接调控宿主的T细胞分化和自身免疫进程,且该酶的活性可以通过膳食营养(精氨酸)进行精准调控。Cgr2由此成为连接微生物代谢、饮食和自身免疫性疾病的关键分子节点。
E. lenta代谢产物及细胞组分对宿主免疫功能的影响
编辑
• 胆汁酸对T细胞的双向调节
与Cgr2的促炎作用不同,E. lenta产生的胆汁酸代谢产物对T细胞具有抗炎和促炎的双重调节作用,这些看似矛盾的效应反映了E. lenta免疫调节的复杂性:同一菌株可以同时产生促炎和抗炎的代谢产物,其净效应取决于菌株的基因组成、代谢状态、微环境和宿主背景。
• B细胞与IgA应答影响肠道免疫
E. lenta 与 B 细胞的互作在多发性硬化(MS)中备受关注。MS 患者粪便中,E. lenta 是 IgA 包被比例最高的细菌之一,提示其可能被黏膜免疫系统识别为潜在致病原。
活动性脑炎症期间,IgA⁺ B 细胞增多并聚集于炎症病灶,可穿过血脑屏障。部分由脑脊液 IgA⁺ B 细胞克隆获得的抗体能够结合 E. lenta,且对其结合能力强于对宿主抗原,提示 E. lenta 特异性 B 细胞可能由肠道迁移至中枢神经系统并参与 MS 炎症。
E. lenta 这种肠道细菌可能通过两种方式影响炎症和免疫疾病:一方面,它参与生成一种叫作 TUDCA 的物质,TUDCA 能降低中性粒细胞的过度活跃,从而可能帮助缓解炎症;另一方面,E. lenta 某些蛋白与人体关节软骨中的 II 型胶原很相似,免疫系统可能因此“认错对象”,在攻击细菌时也误伤自身关节组织。这种分子模拟可能增强炎症信号、减少调节免疫反应的 Treg 细胞,并促进自身抗体产生,从而增加类风湿性关节炎发生或加重的风险。这说明E. lenta 具有“双重免疫调控作用。
迟缓埃格特菌(Eggerthella lenta)与多种疾病存在关联,这些关联的强度和证据级别各不相同。
1
炎症性肠病(IBD)
证据最充分
IBD(包括克罗恩病和溃疡性结肠炎)是E. lenta疾病关联研究中证据最充分的领域。
• 炎症性肠病患者中E. lenta丰度升高
多项宏基因组学研究一致显示,E. lenta在IBD患者粪便中显著富集。更精细的分析表明,IBD患者中富集的是特定的E. lenta菌株谱系,而非简单的物种水平丰度增加。表达cgr2的菌株与疾病严重程度的相关性尤为显著。
• 补充精氨酸可能改善结肠炎
膳食精氨酸补充能够抑制相关菌株的促 Th17 代谢活性,并缓解小鼠结肠炎,提示饮食—菌群—免疫轴可能成为 IBD 干预的研究方向。
需要指出的是,E. lenta在IBD中的富集也可能是疾病状态的结果而非原因。IBD患者肠道中精氨酸可用性增加、氧化还原环境改变、IgA产生增多等因素可能为E. lenta提供了竞争优势。
因此,E. lenta在IBD中可能扮演”加速器”而非”启动器”的角色。
2
类风湿性关节炎(RA)
证据来自多项独立研究
类风湿性关节炎(RA)是一种以关节滑膜炎和自身抗体产生为特征的自身免疫病。E. lenta在RA患者肠道中富集的证据来自多项独立研究。在动物模型中,E. lenta加重了胶原诱导的关节炎,增加了促炎细胞因子和类风湿因子水平。
• E. lenta促进类风湿关节炎的机制
机制上,E. lenta可能通过两条途径促进RA:一是Cgr2介导的Th17激活(Th17在RA发病中起核心作用);二是II型胶原模拟蛋白诱导的抗原特异性自身免疫。这两条途径可能协同作用,共同驱动关节炎症。
3
多发性硬化(MS)
证据强度一般
• E. lenta在多发性硬化患者中富集
多发性硬化(MS)是一种中枢神经系统脱髓鞘疾病。多项研究报告E. lenta在MS患者中富集。最引人注目的发现是E. lenta特异性IgA⁺ B细胞能够从肠道迁移至中枢神经系统,参与活动性病灶的炎症反应,这一发现为“肠-脑轴”在MS中的作用提供了具体的细胞和分子机制。
4
其他自身免疫性疾病
• 系统性红斑狼疮(SLE):未治疗的SLE患者肠道中E. lenta富集,且与自身免疫和促炎特征相关。
• 格雷夫斯病:患者肠道菌群组成和基因改变中,E. lenta被鉴定为特异性诊断生物标志物。
• 强直性脊柱炎和脊柱关节炎:E. lenta在患者中富集,但因果关系尚未建立。
• 白塞氏葡萄膜炎:报告了E. lenta的富集。
• 乳糜泻:仅治疗患者中显示富集,需排除治疗混杂因素。
• IgG4相关疾病和系统性硬化症:经模型调整后仍显示E. lenta富集。
5
代谢性疾病
• 2型糖尿病(T2D):E. lenta在T2D患者中富集。有研究通过纳入初治患者和糖尿病前期对照,部分排除了二甲双胍治疗的混杂影响。
机制上,E. lenta 可产生咪唑丙酸,该代谢物通过 mTORC1 损害胰岛素信号,并影响动脉粥样硬化和下丘脑功能。
• 终末期肾病:E. lenta在患者中富集,且动物实验支持其致病作用。
6
心血管疾病
• 动脉粥样硬化:E. lenta相关的咪唑丙酸被证明是动脉粥样硬化的驱动因子和治疗靶点。
• 急性冠脉综合征:未治疗患者中E. lenta富集。
• 心力衰竭:经模型调整后仍显示富集。
考虑到地高辛是治疗心衰和房颤的常用药物,而E.lenta能够灭活地高辛,该菌在心血管疾病中的作用具有双重意义:它既可能通过炎症代谢物促进心血管疾病,又可能直接影响心血管药物的疗效。
7
肿瘤
E. lenta与肿瘤的关系呈现复杂的双向模式:
• 胰腺癌:孟德尔随机化分析和小鼠实验均支持E.lenta对胰腺癌的保护作用,其机制涉及肿瘤浸润CD8⁺ T细胞和自然杀伤T细胞的增加。
• 结直肠腺瘤和息肉:E. lenta在腺瘤性息肉患者中减少,但在结直肠癌中的关联结果不一致。在粪便免疫化学试验阳性的人群中,E. lenta被报告为减少。
• 肺腺癌:在初治患者中富集。
这些结果提示,E. lenta在不同肿瘤类型和不同疾病阶段中可能扮演不同角色,从保护因子到风险因子都有可能。
8
炎症性肠病(IBD)
• 阿尔茨海默病:E. lenta在患者中富集。
• 重度抑郁症:报告了富集。
• 精神分裂症:仅在抗精神病药物治疗后富集,提示可能是药物效应而非疾病本身的特征。
• 慢性疲劳综合征/肌痛性脑脊髓炎:关联结果不一致,有报告减少,也有报告富集。
咪唑丙酸对下丘脑活动和应激相关行为的调节,以及E. lenta特异性B细胞向中枢神经系统的迁移,为理解”肠-脑轴”提供了新机制。
9
菌血症与机会性感染
尽管E. lenta通常被视为肠道共生菌,但在免疫功能低下、胃肠道屏障受损或存在腹腔感染灶的患者中,该菌可引起菌血症。
研究系统分析了 E. lenta 菌血症的临床和微生物学特征,发现其常与胃肠道恶性肿瘤、腹腔手术及憩室炎相关,且多为多微生物感染。该菌通常对甲硝唑、碳青霉烯类和氯霉素敏感,但对万古霉素和氨基糖苷类的敏感性差异较大。
潜在有益作用
与上述疾病关联形成对比的是,E. lenta也有许多的健康保护作用:
• 抗菌防御:E. lenta产生的DCA抑制艰难梭菌生长,isoLCA/isoalloLCA抑制艰难梭菌和耐万古霉素肠球菌,PLA抑制金黄色葡萄球菌。
• 抗病毒/抗真菌免疫:特定菌株激活Th17细胞,这可能增强对病毒和真菌感染的黏膜防御。
• 抗炎平衡:3-oxoLCA/isoLCA抑制Th17,isoDCA/isoalloLCA促进Treg,这些抗炎代谢产物可能帮助维持肠道免疫稳态。
• 长寿相关:百岁老人肠道中E. lenta产生的isoLCA和isoalloLCA水平升高,与抗菌防御和健康长寿相关。
▸ 饮食干预
饮食是调控肠道菌群最安全、最可行的手段。针对E. lenta的饮食干预策略包括:
①精氨酸补充
高精氨酸饮食(3% Arg)可抑制 Cgr2 活性,阻断 cgr2⁺ E. lenta 激活 Th17 细胞及加重结肠炎。
精氨酸经精氨酸脱亚胺酶途径代谢,高浓度可能通过改变细胞内氧化还原状态或竞争性结合 Cgr2 活性位点抑制其功能。需注意,精氨酸也是 E. lenta 的生长限制因子,过量摄入或可促进其增殖,整体效应仍待进一步研究。
② 多酚饮食
摄入富含木脂素(亚麻籽、芝麻、全谷物)、鞣花单宁(浆果、核桃)和羟基肉桂酸(咖啡、水果、全谷物)的食物,可以为E. lenta提供代谢底物,促进肠木脂素、尿石素和PLA等有益代谢产物的产生。
然而,由于E. lenta菌株的代谢能力存在个体差异,“精准营养”需要考虑个体的菌群组成。
③ 膳食纤维
虽然E. lenta不直接发酵复杂多糖,但膳食纤维通过改变肠道整体环境(pH、短链脂肪酸、微生物互作)间接影响E. lenta的丰度和活性。
④ 饮食模式
西方饮食(高脂肪、高蛋白、低纤维)与E. lenta丰度增加相关,而地中海饮食等富含植物性食物的饮食模式可能促进该菌的有益代谢活性。
▸ 药物共给药与剂量调整
① 地高辛与抗生素
当地高辛与抗生素合用时,E. lenta被抑制可能导致地高辛血药浓度升高和毒性风险增加。反之,携带cgr2⁺菌株的患者可能需要更高剂量的地高辛。临床建议在使用地高辛前检测E. lenta cgr2状态,并在抗生素治疗期间加强血药浓度监测。
② Cgr2抑制剂
基于Cgr2的酶学特征和结构,开发特异性抑制剂可能成为治疗cgr2⁺ E. lenta相关IBD和RA的新策略。精氨酸本身可作为天然抑制剂,但更强效和特异的小分子抑制剂有待开发。
③ P-糖蛋白调控
肠道放线菌分泌的P-糖蛋白ATP酶抑制剂可促进药物吸收,这一发现提示可以通过调控微生物来优化口服药物的生物利用度。
▸ 益生菌与工程菌
• 有益菌株的筛选:部分E. lenta菌株(如不表达cgr2但产生抗炎胆汁酸的菌株)可能作为下一代益生菌。然而,由于该菌的厌氧特性和潜在的机会性感染风险,安全评估需极为谨慎。
• 工程化E. lenta:2022年开发的CRISPR-Cas遗传工具使得工程化E. lenta成为可能。未来可以设计具有增强抗炎代谢产物产生、缺失致病基因(如cgr2)或携带治疗性分子的工程菌株。
• 合成菌群:构建包含E. lenta和其他协作菌的合成群落,用于特定代谢功能的重建(如木脂素转化或艰难梭菌抗性)。
▸ 噬菌体治疗
• 烈性噬菌体:从废水中分离的E. lenta噬菌体以及通过生物信息学预测的噬菌体为靶向清除特定致病菌株提供了可能。噬菌体治疗具有高度物种甚至菌株特异性,不会像抗生素那样破坏整个菌群。
• 工程化噬菌体:利用原噬菌体元件工程化改造的烈性噬菌体可用于递送CRISPR-Cas系统或其他治疗性载荷,实现精确的基因敲除或代谢调控。
然而,E. lenta强大的CRISPR-Cas防御系统和其他防御机制是噬菌体治疗面临的主要挑战。需要筛选能够逃避宿主防御的噬菌体,或开发联合策略来克服细菌耐药。
目前,DNA递送至肠道厌氧菌仍是技术瓶颈,但噬菌体和接合质粒的研究进展正在逐步克服这一障碍。
▸ 粪菌移植(FMT)的考量
在粪菌移植(FMT)实践中,供体和受体的E. lenta菌株类型可能影响移植效果。例如,向IBD患者移植不携带cgr2的E. lenta菌株可能有益,而移植cgr2⁺菌株则可能有害。未来的FMT可能需要对供体进行菌株水平的筛选。
主要参考文献
Rock R, Zhang S, Noecker C, et al. Eggerthella lenta: metabolism, pathogenesis and therapeutic implications[J]. Nature Reviews Microbiology, 2026: 1-14
Eggerth AH. The Gram-positive non-spore-bearing anaerobic bacilli of human feces. J Bacteriol. 1935;30(3):277-299.
Moore WEC, Cato EP, Holdeman LV. Eubacterium lentum (Eggerth) Prevot 1938: emendation of description and designation of the neotype strain. Int J Syst Bacteriol. 1971;21:299-309.
Noecker C, et al. Systems biology elucidates the distinctive metabolic niche filled by the human gut microbe Eggerthella lenta. PLoS Biol. 2023;21:e3002125.
Kageyama A, Benno Y, Nakase T. Phylogenetic evidence for the transfer of Eubacterium lentum to the genus Eggerthella lenta gen. nov., comb. nov. Int J Syst Bacteriol. 1999;49:1725-1732.
Gardiner BJ, et al. Clinical and microbiological characteristics of Eggerthella lenta bacteremia. J Clin Microbiol. 2015;53:626-635.
Bisanz JE, et al. A genomic toolkit for the mechanistic dissection of intractable human gut bacteria. Cell Host Microbe. 2020;27:1001-1013.e9.
Koppel N, Bisanz JE, Pandelia ME, Turnbaugh PJ, Balskus EP. Discovery and characterization of a prevalent human gut bacterial enzyme sufficient for the inactivation of a family of plant toxins. eLife. 2018;7:e33953.
Haiser HJ, et al. Predicting and manipulating cardiac drug inactivation by the human gut bacterium Eggerthella lenta. Science. 2013;341:295-298.
Parte A, et al. Bergey’s Manual of Systematic Bacteriology: Volume 5: The Actinobacteria. Springer; 2019.
Sperry JF, Wilkins TD. Arginine, a growth-limiting factor for Eubacterium lentum. J Bacteriol. 1976;127:780-784.
Liu Y, et al. Decoding the role of the arginine dihydrolase pathway in shaping human gut community assembly and health-relevant metabolites. Cell Syst. 2025;16:101292.
Reese AT, et al. Microbial nitrogen limitation in the mammalian large intestine. Nat Microbiol. 2018;3:1441-1450.
Little AS, et al. Dietary- and host-derived metabolites are used by diverse gut bacteria for anaerobic respiration. Nat Microbiol. 2024;9:55-69.
Koh A, et al. Microbially produced imidazole propionate impairs insulin signaling through mTORC1. Cell. 2018;175:947-961.e17.
Mastrangelo A, et al. Imidazole propionate is a driver and therapeutic target in atherosclerosis. Nature. 2025;645:254-261.
Agirman G, et al. The microbial metabolite imidazole propionate modulates hypothalamic activity and stress-induced behaviors. Cell Host Microbe. 2025;33:2030-2042.e9.
Dong X, et al. Genetic manipulation of the human gut bacterium Eggerthella lenta reveals a widespread family of transcriptional regulators. Nat Commun. 2022;13:7624.
Alexander M, et al. Human gut bacterial metabolism drives Th17 activation and colitis. Cell Host Microbe. 2022 Jan 12;30(1):17-30.e9.
Kyaw TS, et al. Human gut Actinobacteria boost drug absorption by secreting P-glycoprotein ATPase inhibitors. iScience. 2024;27:110122.
Maini Rekdal V, Bess EN, Bisanz JE, Turnbaugh PJ, Balskus EP. Discovery and inhibition of an interspecies gut bacterial pathway for levodopa metabolism. Science. 2019;364:eaau6323.
谷禾健康
高血压是全球范围内最常见的心血管疾病之一,被称为威胁人类健康的”无声杀手”。在很多人看来,高血压只是“血管的问题”,长期以来,习惯于从遗传、饮食、压力等角度去理解它的成因,却很少意识到,高血压其实是牵动全身多个系统的“联动反应”。不仅与单一因素相关,还涉及神经系统、内分泌系统、体液系统和免疫系统等多个器官系统。
与此同时,在我们身体深处还住着另一位”隐形参与者”——肠道菌群。数以万亿计的微生物栖息于消化道,它们并非沉默的旁观者,而是深度参与免疫调节、代谢合成乃至神经信号传递的活跃角色。那么,血压的升降,是否也与这些微生物息息相关呢?
近年来研究带来了更清晰的解释:在高血压状态下,肠道紧密连接蛋白异常表达、肠黏膜通透性升高,菌群结构失调,导致肠屏障受损。此时,细菌及其代谢产物(如内毒素)更易越过黏膜进入体循环,引发系统性炎症反应,并进一步损害心血管功能,形成“肠漏—炎症—血压升高”的恶性循环。
与此同时,经典危险因素如高盐饮食也已被证实会通过改变肠道菌群组成(例如厚壁菌门/拟杆菌门比值异常升高)影响血压水平。这些发现为我们理解高血压的发病机制提供了一个全新的病理生理框架:肠道,或许正是血压调控一个被长期忽视的关键节点。
更令人振奋的是,运动训练展现出了打破这一恶性循环的潜力。动物实验与人群研究一致表明,中等强度运动能够恢复肠绒毛长度、增加杯状细胞数量、上调紧密连接蛋白表达,从而修复肠道屏障、抑制局部炎症;同时,运动还可重塑肠道菌群结构及其代谢谱(如Faecalibacterium prausnitzii、双歧杆菌属、乳杆菌属、Roseburia属和拟杆菌属),经由短链脂肪酸(SCFAs)、脂多糖(LPS)、氧化三甲胺(TMAO)及胆汁酸等多条代谢通路参与血压调控。不仅如此,运动通过肠-脑轴双向通路影响交感神经活动与神经炎症,进一步从中枢层面发挥持续降压效应。换言之,一次规律的运动,不仅锻炼了肌肉与心肺,也在悄然重塑着我们肠道内的微生态世界。
本文将围绕”肠道菌群—运动—高血压“这一三角关系,系统梳理高血压状态下肠道结构与功能的病理改变,深入解析运动经由菌群代谢物、免疫调节与肠脑轴等多重通路发挥降压作用的科学证据,并探讨这一领域对未来高血压防治策略的启示。通过这些来自微观世界的发现,能为广大读者打开一扇重新认识高血压的窗口——血压的管理,或许不仅在于”管住嘴、迈开腿”这般简单,更在于倾听肠道里那些微生物与身体之间的深层对话。
doi: 10.1080/10641963.2025.2608905.
高血压、肠道健康与锻炼之间并非孤立存在,而是可以通过多重生理通路相互牵连。
高血压状态下的肠道结构与功能改变
高血压与肠道健康之间存在密切且双向的联系。
↘ 高血压患者常伴随肠道屏障失衡
动物实验证实,高血压状态伴随肠道紧密连接蛋白表达异常、肠黏膜通透性增加以及菌群结构失调。
在自发性高血压大鼠等模型中,可观察到肠绒毛萎缩、杯状细胞数量减少、肠壁纤维化及屏障功能减退等病理改变。
↘ 肠屏障受损使有害物质进入从而触发炎症反应
肠屏障完整性受损使得细菌及其代谢产物(如内毒素)易于跨越黏膜进入体循环,进而触发系统性炎症反应,并对心血管系统产生负面影响。这一”肠漏—炎症—血压升高“的恶性循环,为理解高血压的发病机制提供了新的病理生理框架。
高盐饮食可能通过菌群失调影响高血压
高盐饮食是高血压与心血管疾病的主要诱因之一。
↘ 高盐饮食伴随肠道菌群改变和血压升高
近期研究表明,肠道菌群失调可能是盐敏感性高血压(SSH)的重要致病因子。研究证实,实验大鼠在8%钠盐饮食条件下,肠道微生物群组成发生显著改变,同时收缩压与舒张压明显升高。
↘ SSH 患者厚壁菌门/拟杆菌门比值升高
进一步临床研究显示,SSH 患者与非盐敏感性高血压患者之间存在明显的菌群差异,特定细菌丰度的变化与 SSH 严重程度显著相关,其中最具代表性的改变是厚壁菌门/拟杆菌门(F/B)比值异常升高。
运动展现出修复肠道屏障和降压效果
↘ 运动能改善高血压患者的肠道健康
运动训练已被证明能显著改善高血压动物模型中的肠道健康。它可恢复肠绒毛长度、增加杯状细胞数量、减轻肠壁纤维化,并上调紧密连接蛋白的表达水平,从而改善肠道病理状态并抑制局部炎症。这些效应有助于维持肠屏障完整性,减少有害物质向循环系统的渗漏。
↘ 运动可能通过肠脑轴降压
在自发性高血压(SHR)模型中,运动训练展现出与肠-脑轴重新平衡密切相关的持续降压效果:运动训练可能通过调节肠道微生物群的组成及其代谢产物,影响钠盐的吸收与代谢,从而发挥血压调节作用。
该干预能够减轻肠壁结构异常、防止屏障破坏,并抑制有害因子的系统性扩散,从而恢复肠道微生物平衡,经由肠-脑轴双向通路积极影响血压。
通过16S rRNA测序,研究者发现运动训练可促进与正常血压相关的肠道菌群在SHR大鼠中增加;肠道微生态的恢复对血压具有积极作用。
↘ 运动后毛螺菌科中的产乙酸、丁酸盐菌增加
另有研究表明,运动训练可通过重塑肠道微生物组成调节血压,并显著改善高血压模型的菌群结构:高血压组表现出厚壁菌门(firmicutes)增多和拟杆菌门(Bacteroidetes)减弱,干预后这一比例发生逆转。这一转变的特点是毛螺菌科(Lachnospiraceae)和瘤胃球菌科(Ruminococcaceae)科中产乙酸盐和丁酸盐的细菌数量增加,乳酸产菌水平下降。
尽管运动影响肠道微生物及血压的具体机制仍不清晰,但现有证据提示,高血压与肠道之间的“对话”受肠道微生物群及其代谢物调控。
★ 菌群多样性与血压有关
研究发现,肠道微生物多样性与血压水平呈负相关,即菌群多样性越低,血压升高的风险越大。肠道微生物群通过产生多种生物活性代谢物参与血压调控,其中短链脂肪酸、脂多糖、三甲胺-N-氧化物及胆汁酸四条通路研究最为深入。
肠道微生物群及其代谢物影响血压调节
doi: 10.1080/10641963.2025.2608905.
而运动训练可通过重塑菌群结构与代谢谱,经由这些通路发挥降压效应。
短链脂肪酸(SCFAs)通路
—“免疫抗炎 + 肠屏障保护、激活肠源激素-中枢调控”
短链脂肪酸(SCFAs)——主要包括乙酸盐、丁酸盐和丙酸盐——是最早被发现的血压调节性肠道代谢物之一。
↘ SCFAs通过G蛋白偶联受体调节血压中枢
SCFAs 由肠道微生物发酵膳食纤维产生,可直接激活位于肠黏膜中的G蛋白偶联受体(GPCRs),这些受体广泛表达于从胃肠道黏膜到免疫细胞与神经系统的多种细胞类型。受体激活刺激肠内分泌细胞释放胰高血糖素样肽-1(GLP-1)和肽 YY(PYY)等肠源性激素,后者经血液循环到达中枢神经系统,调节血压调控中枢的活性。
↘ 丁酸盐可以抑制Th17介导的血管炎症反应
与此同时,SCFAs 的缺乏会破坏肠道屏障完整性,进而促使血压升高。其中,丁酸盐还可通过抑制组蛋白去乙酰化酶(HDACs)下调促炎基因表达,并促进调节性 T 细胞分化,从而抑制 Th17 介导的血管炎症反应。
↘ 运动可能通过短链脂肪酸通路发挥降压作用
影响因子:3.998
在人群干预层面,有研究对 17 名超重成年女性实施了为期六周的耐力训练,发现重塑了血清/粪便代谢谱并改善肠道菌群多样性,伴随与心血管相关的脂质代谢特征变化(如血清溶血磷脂酰胆碱升高、粪便甘油磷酸胆碱升高,并与阿克曼氏菌(Akkermansia)丰度相关)。
并且运动训练后参与者粪便中拟杆菌属、毛螺菌科细菌及梭菌纲细菌显著富集,而这些类群均与 SCFA 的产生密切相关,提示运动训练可经由短链脂肪酸(SCFA)通路发挥降压作用。
脂多糖(LPS)通路
—“抑制内毒素产生与释放、减弱炎症/内毒素血症”
脂多糖是革兰氏阴性菌外膜的主要内毒素成分。
↘ 高血压患者脂多糖代谢通路显著增强
影响因子:4.545
肠道微生物群分析显示,高血压患者体内脂多糖(LPS)的生物合成与代谢通路活性显著高于健康对照。动物研究进一步发现:2月龄与21月龄的小鼠经四周训练后,血清 LPS 水平均出现下调。
↘ 运动可能减少了脂多糖的产生和释放
在菌群层面,以革兰氏阴性菌为主的丰度与脂多糖(LPS)水平呈正相关,而运动训练可降低拟杆菌属等的丰度,从而减少 LPS 的产生与释放。LPS 诱导的炎症反应及内毒素血症的减弱,对高血压患者具有明确的治疗获益。
氧化三甲胺(TMAO)通路
—“降低TMAO蓄积,改善血管功能与血压关联风险”
三甲胺在体内氧化后形成三甲胺-N-氧化物(TMAO),其产生依赖于肠道微生物群的代谢活动。
↘ 运动能降低氧化三甲胺浓度来改善血压
编辑
影响因子:4.556
人群研究表明,血液 TMAO 水平升高与血管功能受损及血压升高相关。在运动干预方面,久坐小鼠在西方饮食条件下 TMAO 水平显著高于具有运动训练的小鼠;而当运动小鼠额外补充 TMAO 后,其 TMAO 水平与久坐小鼠趋于接近。
编辑
doi: 10.3390/ijms24032399.
这一结果提示,运动训练可能通过降低 TMAO 水平,帮助维持血压与血管健康。
胆汁酸通路
—“通过FXR/TGR5受体信号调控血压,并与心血管风险相关”
肠道微生物群在胆汁酸的二次代谢中发挥关键作用。除参与胆固醇代谢外,胆汁酸还可通过激素分泌与受体信号机制影响血压。
↘ 共轭胆汁酸可通过调控胆汁酸受体活性影响血压
在血管紧张素 II(AngII)灌注小鼠模型中发现,粪便胆汁酸排泄量增加,且与冠状动脉疾病风险呈负相关,提示胆汁酸水平可能与心血管疾病风险相关。
进一步研究表明,共轭胆汁酸可通过调节法尼醇 X 受体(FXR)和 TGR5 等胆汁酸受体活性来降低血压,揭示了胆汁酸在血压调控中的潜在作用。
↘ 运动可通过影响胆汁酸水平调节血压
编辑
影响因子:3.469
在运动干预层面,一项针对年轻久坐成年人的研究显示,阻力运动训练可提高血浆胆汁酸水平,表明胆汁酸水平可经由运动训练调节,进而可能对血压控制产生积极影响。
综合上述四条通路可以看出,中等强度运动训练不仅能够显著影响人类肠道微生物群的结构与多样性,也会进一步改变其相关代谢物的组成与代谢特征。
更重要的是,这些与肠道微生态相关的改变能够通过短链脂肪酸(SCFAs)、脂多糖(LPS)、氧化三甲胺(TMAO)以及胆汁酸等多条代谢通路参与血压调控过程,从而在肠-宿主互作层面为血压相关的改善提供潜在基础。
然而,这些效应背后的具体分子机制仍有待进一步阐明。
肠道不仅是消化器官,也是人体最大的免疫器官。肠道微生物群通过与免疫细胞的相互作用调节免疫系统的反应。肠道微生物群的平衡使免疫细胞能够高效识别并消除病原体,从而维持生物体的健康状态。
肠道屏障受损:高血压“微生态-炎症”起点
文献表明,高血压的发生机制与肠道屏障完整性受损密切相关。高盐饮食或过度的交感神经激活可破坏肠道紧密连接蛋白,进而增加肠道通透性。
↘ 高盐饮食脂多糖增加并诱发炎症反应
通透性升高使细菌、微生物及其代谢物进入循环,促进中性粒细胞活化。在相关病理条件下,肠道微生物群失调表现为脂多糖(LPS)产生增加;LPS与Toll样受体4(TLR4)相互作用引发炎症反应。随后,当LPS从肠道转移至循环系统并与LPS结合蛋白(LBP)形成复合物时,可激活免疫系统并产生促炎细胞因子。
这些因子不仅推动全身炎症,也可通过激活交感神经系统进一步增加周围血管阻力,从而导致血压升高;此外,系统性LPS可能直接作用于中枢神经系统,诱发神经炎症,进一步加重高血压的发病过程。
T细胞活化与血管内皮损伤
编辑
影响因子:7.713
↘ 自发性高血压免疫球蛋白A缺失、菌群失衡
研究发现,自发性高血压大鼠(SHR)在多种部位出现选择性IgA缺乏,在粪便、盲肠内容物、血清及肝/小肠中IgA水平显著低于正常组,且在不同来源、不同性别及不同年龄段均观察到该趋势。
肠道菌群失调伴随清除能力不足信号:SHR既有粪便菌负荷减少(且部分菌群如双歧杆菌几乎难以检测),又有盲肠细菌负荷升高,提示菌群生态失衡与排出/清除异常并存。
↘ 活化的T细胞浸润主动脉会损害内皮功能并升高血压
T细胞在促炎性高血压级联反应中至关重要。活化的T细胞随后浸润主动脉,损害内皮功能并升高血压,进一步证实T细胞激活在高血压发病机制中的关键作用。
运动:修复肠道屏障、降低免疫过度激活
编辑
影响因子:7.74
运动训练对高血压的有益作用可部分通过调节并修复肠道屏障实现:肠道屏障的改善能够改变肠道环境,抑制有害细菌的增殖与活动,从而减少其对机体的不利影响。
↘ 中等强度的运动有效降低免疫过度激活和炎症
研究指出,高强度运动可能导致肠道紊乱并增加通透性;而中等强度运动则可通过促进肠道蠕动并增加有益微生物,积极改善肠道健康。
在一项为期八周的自发性高血压(SHR)运动训练研究中发现,运动训练可提高小肠上皮细胞中紧密连接蛋白表达并降低肠道通透性,从而改善肠道屏障结构。这些改变可最大限度减少肠壁损伤与渗漏,限制有害物质进入循环,进而降低免疫系统过度激活与炎症反应,促进运动训练的降血压效果。
不同运动的潜在机制会诱导肠道微生物群的变化
编辑
doi: 10.1080/19490976.2024.2404141.
适当的锻炼能促进胆汁酸(BA)的产生,缩短肠道通过时间,促进肌脉的释放,从而促进健康的肠道微生物群的形成。然而,过度运动可能导致严重的热应激,减少肠道血流,促进氧化应激,并激活HPA轴,最终导致微生物群失调。
微生物组重塑与免疫调节:益生菌增多、相关炎症减轻
↘ 运动增加双歧杆菌和乳杆菌有益于免疫,促进抗炎细胞因子分泌
在高血压模型中,运动训练能够减少与高血压相关的微生物种类丰度,同时增加支持正常血压的微生物种类。具体而言,运动训练提高双歧杆菌(Bifidobacterium)和乳酸杆菌(Lactobacillus)水平,并降低螺旋杆菌(Helicobacter)。
作为关键益生菌,双歧杆菌与宿主免疫调节密切相关:其可抑制Th2和Th17细胞分化,并促进抗炎细胞因子(如白介素-27和干扰素β)的表达。
因此,通过运动训练提升肠道内双歧杆菌的丰度,可能有助于缓解炎症并调节高血压相关的血压变化。
注:尽管现有研究已揭示肠道微生物群失调、免疫激活与高血压之间的关联,以及运动训练通过保护肠道健康改善高血压的潜在机制,但鉴于人类肠道微生物群组成、免疫反应与环境影响因素相较动物模型更为复杂,仍需进一步研究。
运动调节肠道微生物群和修复肠道屏障来改善血压
编辑
doi: 10.1080/10641963.2025.2608905.
肠脑轴是连接消化道与中枢神经系统的复杂双向通讯网络,借助神经、激素与免疫信号共同调控机体功能。
PVN小胶质激活致交感增强诱发神经炎症
在下丘脑室旁核(PVN)中,高血压相关信号可被感知并经中枢通路传递,从而增强交感神经活动。该过程伴随PVN内小胶质细胞激活:小胶质细胞被激活后诱发神经炎症,并进一步提升对肠道的交感信号输出。
编辑
doi: 10.1080/10641963.2025.2608905.
值得注意的是,这种交感增强与炎症状态密切耦合;炎症可反过来影响肠道微生物群组成,并改变肠道通透性,可能形成“中枢炎症—肠道稳态失衡—再反馈”的病理路径。
调整肠道菌群缓解肠脑轴交感亢进
运动训练有助于调节肠道微生物群的平衡,而肠道微生物群又通过自主神经系统影响肠脑轴的功能,而自主神经系统对管理高血压至关重要。
↘ 运动与粪菌移植可调节肠道微生物群,缓解神经炎症,从而影响血压
研究人员将经过运动训练的自发性高血压(SHR)小鼠粪便微生物群(FMT)移植到未接受运动训练的人群中。FMT显著降低了运动训练SHR中的交感神经活动,并改善了下丘脑PVN小胶质细胞激活,从而缓解了神经炎症。
通过胃囊输送了受体SHR大鼠的粪便样本。比较分析显示,受体SHR大鼠的小胶质细胞数量和大小显著增加。这种小胶质细胞活动的增加减弱了神经元活动,从而减少了交感神经活动。这些发现表明FMT改善了高血压中肠脑轴功能受损,突显了肠道微生物群在血管功能障碍和高血压中的作用。
SCFAs跨血脑调控肾素-血管紧张素系统
肠道微生物可通过发酵膳食纤维产生短链脂肪酸(如乙酸盐、丙酸盐和丁酸盐)。这些代谢物不仅为肠道上皮细胞提供能量,还能穿过血脑屏障并直接影响中枢相关区域。
编辑
影响因子:3.707
有研究进一步发现,SCFAs在脑内可调节G蛋白偶联受体(GPCRs),例如GPR41与GPR43的活性,并通过抑制肾素-血管紧张素系统(RAS)来减少血管炎症。
微生物群-肠道-大脑轴
编辑
doi: 10.3389/fnins.2023.1302957.
短链脂肪酸(SCFAs)作为肠脑轴关键信号分子,可通过调节神经递导与炎症反应积极改善心血管健康;同时,微生物群—大脑功能—行为之间的复杂联系也可能由微生物产生的神经活性物质(如多巴胺、5-羟色胺)介导。
肠菌产生5-羟色氨影响血压
除短链脂肪酸(SCFAs)外,肠道微生物还可通过合成神经递质前体,直接或间接调节中枢神经系统兴奋性。部分菌株参与5-羟色氨酸(一种血清素前体)的合成;另一些菌株则参与色氨酸代谢,从而调控色氨酸与5-羟色胺水平。
↘ 运动调节肠道菌群并可影响5-羟色胺水平
有氧运动训练可调节5-羟色氨酸/5-羟色胺相关水平:乳酸乳球菌(Lactococcus lactis)、植物乳杆菌(Lactobacillus plantarum)、嗜热链球菌(Streptococcus thermophile)、摩根氏菌(Morganella morganii)、肺炎克雷伯菌(Klebsiella pneumoniae)等菌群可与血清素合成相关;其中能够产生5-羟色胺的细菌(尤其乳酸杆菌属)可能随有氧训练促进的微生物多样性增加而上调。
因而,有氧运动可能通过提高与5-羟色胺生成相关的有益菌株丰度,对高血压调控产生积极影响。
综上所述,高血压、肠道健康与运动三者之间并非孤立存在,而是通过”菌群—代谢—免疫—神经“多重通路紧密交织、相互制衡的有机整体。一方面,高血压状态会引发肠道紧密连接蛋白表达异常、肠黏膜通透性增加及菌群结构失调,形成”肠漏—炎症—血压升高“的恶性循环;高盐饮食等诱因进一步加剧厚壁菌门/拟杆菌门比值异常,推动盐敏感性高血压的发生。
另一方面,中等强度运动能够帮助恢复肠绒毛结构、上调紧密连接蛋白、重塑菌群组成,经由短链脂肪酸、脂多糖、氧化三甲胺及胆汁酸四条核心代谢通路参与血压调控;同时通过富集双歧杆菌、乳杆菌等有益菌优化免疫反应,抑制 Th17 介导的血管炎症与 T 细胞过度活化,并借助肠—脑轴双向通讯缓解下丘脑室旁核(PVN)小胶质细胞激活所致的交感亢进与神经炎症。
由此可见,肠道菌群是连接运动与血压改善的关键”中介枢纽”:运动以肠道微生态为支点,撬动了从局部屏障修复到中枢神经调控的层层降压效应。
基于这一“肠—免疫—脑—血管”多维调控网络,以肠道菌群为干预靶点的非药物防治策略展现出可观的未来治疗可行性:
• 运动处方精准化:依据个体菌群特征(如产SCFA 菌丰度、F/B 比值、LPS 水平)定制运动类型、强度与周期,有望实现“菌群分型—运动匹配”的个性化血压管理,避免高强度运动反而加重肠道紊乱的风险。
• 菌群定向干预:粪菌移植(FMT)、特定益生菌(如双歧杆菌、乳杆菌)与益生元的补充,可承接运动对菌群的重塑效应,为无法耐受运动或运动效果有限的人群提供替代或协同路径——研究已证实,运动训练的粪菌移植可显著降低交感神经活动并缓解神经炎症,为”菌群治疗”提供了直接证据。
• 代谢物靶向调控:针对 SCFAs、TMAO、胆汁酸等关键代谢物的药物或营养干预,可在通路层面精准干预血压调控节点,弥补单纯生活方式干预的不足。
• 肠脑轴干预:通过调节菌群来源的 5-羟色胺、多巴胺等神经活性物质及 SCFAs 跨血脑屏障对肾素—血管紧张素系统(RAS)的抑制,有望从中枢层面打破”中枢炎症—肠道失衡—交感亢进”的病理反馈环。
需要指出的是,现有证据多来自动物模型与短期人群干预;而在人类中,肠道菌群组成、免疫反应及环境因素更为复杂,运动影响菌群与血压的具体分子机制仍待进一步阐明。未来研究应在更大样本、多中心、长随访的人群队列中验证运动—菌群—血压之间的因果关系,厘清不同运动模式(耐力、阻力、有氧)对菌群代谢谱的差异化作用,并探索在菌群分型基础上制定精准运动处方,及益生菌/FMT与运动的联合干预方案。随着机制研究深化与转化医学推进,“以动调菌、以菌调压”有望成为高血压综合管理中兼具可操作性、安全性与长期获益的重要防治范式,为这一全球性慢病防控提供新路径。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Zhao M, Liu Q, Shi NJ, Li Y, Li HB. Gut microbiota and hypertension: role of exercise training. Clin Exp Hypertens. 2026 Dec 31;48(1):2608905.
Gao C, Wei J, Lu C, Wang L, Dong D, Sun M. A new perspective in intestinal microecology: lifting the veil of exercise regulation of cardiometabolic diseases. Gut Microbes. 2024 Jan-Dec;16(1):2404141.
Hintikka JE, Ahtiainen JP, Permi P, Jalkanen S, Lehtonen M, Pekkala S. Aerobic exercise training and gut microbiome-associated metabolic shifts in women with overweight: a multi-omic study. Sci Rep. 2023 Jul 11;13(1):11228.
Grylls A, Seidler K, Neil J. Link between microbiota and hypertension: Focus on LPS/TLR4 pathway in endothelial dysfunction and vascular inflammation, and therapeutic implication of probiotics. Biomed Pharmacother. 2021 May;137:111334.
El Hage R, Al-Arawe N, Hinterseher I. The Role of the Gut Microbiome and Trimethylamine Oxide in Atherosclerosis and Age-Related Disease. Int J Mol Sci. 2023 Jan 25;24(3):2399.
Li H, Xu M, Xu X, Tang Y, Jiang H, Li L, Xia W, Cui N, Bai J, Dai Z, et al. Faecalibacterium prausnitzii Attenuates CKD via butyrate-renal GPR43 axis. Circ Res. 2022;131:e120–e34.
Yang T, Li H, Oliveira A, Goel R, Richards E, Pepine C, Raizada M. Transcriptomic signature of gut microbiome-contacting cells in colon of spontaneously hypertensive rats. Physiol Genomics. 2020;52:121–132.
谷禾健康
近年来,肠道菌群检测越来越受到关注。无论是个性化营养管理、益生菌补充、慢病风险管理、体重管理,还是肠道功能改善和微生态干预,很多服务都会把肠道菌群检测作为重要参考。
肠道菌群检测也正在从科研工具逐步进入健康管理、慢病风险评估、营养干预、药物反应研究及部分临床辅助场景。
因此肠道菌群检测也越来越常见。然而,公众对肠道菌群检测的理解常常存在两个极端。
从目前的研究和应用现状来看,肠道菌群检测的意义需要放在具体场景中评估。过度放大其预测和干预能力并不科学,而因其仍在发展中就完全否定其价值也不正确。更准确地说,肠道菌群检测是一种具有参考价值的微生态评估工具,其可靠性和应用价值取决于检测目的、技术路径、质量控制、数据库基础、算法模型和解读水平。
很多消费者会觉得:不就是取一点粪便样本,送到实验室测一测,然后出一份报告吗?
从表面看,流程似乎并不复杂,甚至有些机构的报告形式也很相似:列出有哪些菌、哪些菌多了、哪些菌少了,再给出一些饮食或益生菌建议…
今天,谷禾君想结合多年肠道菌群高通量测序检测与分析的实际经验,尤其是在 CNAS 认可和质量体系管理要求下形成的质量控制实践,和大家一起客观聊聊肠道菌群检测的科学价值、应用边界与合理解读。
菌群谱是报告的底层基础,基础不稳,后面的解释就会偏
一份肠道菌群检测报告,通常可以分为几个重要板块。第一大板块就是菌群谱,也就是回答几个最基础的问题:
这一部分相当于一座大楼的水泥、钢筋和砖块,是所有后续分析的基础。后面无论是多样性分析、功能预测、营养代谢评估、炎症风险判断,还是个性化干预建议,都建立在菌群谱是否准确的前提上。
但也正是在这个最基础的环节,最容易引入技术偏差。
样本采集与保存:结果偏差可能从第一步开始
粪便样本并不是普通样本,其中含有大量微生物、宿主细胞、食物残渣、代谢产物以及可能影响后续检测的抑制性物质。
从采样完成到实验室检测之间,样本仍可能受到时间、温度、氧气暴露和运输条件等因素影响。一些对环境变化较为敏感的菌群成分,可能在保存或运输过程中发生比例变化,从而影响最终检测结果对原始肠道状态的反映。
因此,在实际检测中,通常会结合检测目标和技术路线,选择经过验证的样本保存方案,并配套明确的采样说明、运输要求和样本接收标准。需要强调的是,任何保存方式都不是对样本原始状态的“绝对锁定”,但规范化的保存和质控流程,可以尽可能减少样本在采集后到检测前发生的非目标性变化,从而提高检测结果的可靠性。
DNA提取:不同细菌被看见的机会并不一样
肠道菌群由大量不同类型的微生物组成,不同细菌在细胞壁结构、细胞膜特性以及对裂解条件的敏感性上存在差异。有些细菌较容易被裂解并释放 DNA,而有些细菌结构较为坚韧,如果裂解不充分,其 DNA 可能无法被充分提取出来。
因此,DNA 提取并不是一个简单的“把 DNA 提出来”的过程。对于粪便这类成分复杂的样本,如果提取方法没有结合肠道菌群特点进行优化和验证,就可能造成不同菌群 DNA 回收效率不一致:某些菌更容易被检测到,某些菌则可能被低估。
也就是说,检测报告中呈现的菌群比例,不仅受到样本本身组成的影响,也可能受到 DNA 提取方法、裂解强度和纯化效率等实验环节的影响。专业检测通常会通过标准化提取流程、适当的裂解策略、质控指标和方法学验证,尽量减少这类技术偏差,使检测结果更稳定、更具有可比性。
建库和测序:流程参数会影响最终读数
建库和测序是将样本中提取到的微生物DNA 转化为可被测序仪识别和读取的数据的过程。
不同技术路线对应的实验流程并不完全相同。
此外,实验室环境中的微量污染、试剂中的背景 DNA,或不同批次操作带来的细微差异,也可能在某些情况下影响检测结果,尤其是在低生物量样本或样本质量不佳时更需要关注。
因此,专业检测通常不会只依赖单一实验步骤,而是会通过阴性对照、阳性对照、标准菌群样本、重复检测、批次质控和流程验证等方式,对建库和测序过程中的潜在偏差进行识别、监测和控制,从而尽量提高检测结果的稳定性、可比性和可解释性。
原始数据到可用数据,中间不是自动生成那么简单
测序仪下机后得到的通常是FASTQ原始数据。FASTQ文件中不仅包含序列信息,也包含每个碱基的质量值。一般可能认为以为测序完成就等于结果出来。事实上,原始数据距离真正可用于分析的clean data,还有一整套质量控制流程。
质控流程决定哪些数据可以进入后续分析
这些流程包括去除低质量序列、去除接头污染、过滤过短或异常序列、识别嵌合体、合并双端序列、去除宿主污染序列、评估测序深度和样本有效数据量等。
对于宏基因组测序,还涉及更复杂的拼接、基因预测、物种注释、功能注释和丰度计算。
参数设置过松或过严,都会影响结果
如果质控参数设置过松,低质量数据会进入后续分析,带来假阳性;如果设置过严,又可能损失有效信息,导致某些低丰度但重要的菌被过滤掉。
因此,生物信息分析并不是简单套用软件流程,而是需要根据样本类型、测序技术、研究目的和验证结果不断优化。
更关键的是,同一份原始数据,使用不同的分析流程、不同的参数、不同的数据库,最终得到的物种组成可能不完全相同。这也是为什么不同检测机构之间有时会出现结果差异的原因之一。其中参考注释数据库的带来的差异是最大的,这也是我们后面会重点讲的。
数据库和注释方法是影响结果解读的重要环节
测到的这段序列,到底对应哪一种菌?
这是肠道菌群检测不可忽略的问题之一。
目前很多实验室会使用公开数据库,例如16S领域常用的Greengenes、SILVA、RDP等,宏基因组领域则可能使用NCBI、GTDB、UHGG、MetaPhlAn相关数据库等。
这些公共数据库为科学研究和方法开发提供了重要基础,但在实际检测和报告解读中,数据库是否适配人体肠道样本、是否持续更新、是否经过标准样本和真实样本验证,都会影响最终注释结果的准确性和稳定性。
这些问题在数据分析阶段看似只是“注释差异”,但进入报告解读后,可能会进一步影响菌群特征判断、功能推测、风险提示以及个性化建议。因此,肠道菌群检测的可靠性不仅取决于是否使用了某个数据库,更取决于数据库与检测场景的匹配程度、算法流程的验证情况,以及实验室对注释结果进行评估和校正的能力。
谷禾更倾向于采用一种相对稳妥的分析思路:在公共数据库的基础上,结合长期积累的人体肠道样本数据、标准菌群验证结果、算法优化经验以及注释准确性评估体系,对检测结果进行多维度综合判断。
这样既能充分利用公共数据库的开放资源和学术基础,也能根据人体肠道菌群检测的实际场景,对数据库覆盖不足、分类体系差异或算法适配性问题进行识别和校正,从而尽量减少由数据库和注释方法带来的系统性偏差。
正常参考范围决定异常判断可靠性
超标和缺乏,背后依赖的是参考范围
在肠道菌群检测报告中,最容易影响用户判断和后续决策的内容,往往是“某某菌偏高”“某某菌偏低”“某类风险相关菌增加”等提示。而这些判断并不是单纯由检测数值本身决定的,背后还依赖于一个非常重要的基础——参考范围。
所谓“超标”或“缺乏”,本质上是将个体检测结果与某一参考人群或参考数据库进行比较后得到的相对判断。因此,参考范围如何建立,直接影响异常提示的稳定性和解释价值。
参考范围并不应是简单设定的固定边界
需要建立在足够规模、来源清晰、信息完整的人群数据基础上。理想情况下,参考人群应根据年龄、地区、饮食结构、生活方式、健康状态等因素进行合理分层,并结合检测技术路线和统计方法持续优化。否则,如果参考样本量不足,或人群结构与受检者差异较大,所谓“正常范围”就可能不够稳健。
这也意味着,不同实验室、不同数据库或不同算法模型给出的异常提示,可能存在差异。例如,某个菌被提示偏高,既可能确实反映个体菌群特征的改变,也可能与参考队列样本量、分层方式、边界设定或地区饮食差异有关。反过来,某个菌被提示偏低,也可能受到数据库分辨率、注释准确性或参考范围设定方式的影响。
尤其是在涉及潜在致病菌、条件致病菌、炎症相关菌、产毒素相关菌等信息时,更需要避免把报告提示直接等同于疾病诊断。菌群检测中的“检出”不等于感染,“相对丰度偏高”也不等于一定需要药物干预。
谷禾更建议以审慎、综合的方式理解菌群检测结果:检测报告提供的是微生态层面的参考信息,而不是单独用于诊断或干预决策的依据。报告中的风险提示,需要结合个体的症状表现、既往病史、用药情况、饮食结构、免疫状态、其他实验室检查结果,以及医生或专业人员的评估进行综合判断。只有将检测结果放回到具体个体的实际背景中,才能更准确、合理地理解其意义。
CNAS 认可与实验室质量体系:检测可靠性的基础
通过上面的描述,已经了解肠道菌群检测涉及样本采集、保存运输、DNA 提取、建库测序、数据分析和报告解读等多个环节。任何一个环节控制不充分,都可能影响最终结果的稳定性和可解释性。
CNAS 认可并不意味着检测结果可以直接等同于临床诊断,也不代表所有模型解释都天然成立。但它说明实验室在认可范围内,已围绕人员、设备、方法、样本流转、质量控制、记录追溯和报告签发等方面建立了较为规范的管理体系,并接受第三方官方评审。
对于肠道菌群检测而言,这种体系化管理尤为重要。作为 CNAS 认可的肠道菌群检测实验室,在检测过程中更强调全流程质控,包括阴性/阳性对照、空白对照、批次质控、污染监测、测序质量评估和异常样本复核等环节,尽量减少批次差异、背景污染和流程波动对结果的影响。
因此,选择肠道菌群检测机构时,除了关注报告内容,也应关注其实验室资质、质控体系、方法验证和结果解释边界。对于复杂的微生态检测来说,规范的实验室体系,是结果值得被认真参考的重要基础。
编辑
如果说肠道菌群检测报告的第一层壁垒
是把菌群谱测准、注释准、解释准;
那么第二层壁垒,
就是如何基于菌群数据
进行健康状态或疾病风险评估。
疾病风险评估不是“列几个特征菌”那么简单
疾病风险评估的基础,是菌群差异是否具有参考意义
目前许多肠道菌群报告中都会设置疾病风险或健康风险评估板块。其基础逻辑是:既然某些疾病人群与健康人群存在菌群差异,那么是否可以通过一个人的菌群特征,推测其更接近健康状态,还是更接近某类疾病相关状态?
这一部分往往也是消费者最关注、同时最容易被误解的内容。很多人拿到报告后,最先看的不是有哪些菌,而是自己有没有炎症风险、代谢风险、神经系统系统风险、肠易激风险、肥胖风险、糖尿病风险等。某种意义上,这也是肠道菌群检测最具应用价值的方向之一。
科研相关性,不等于个体预测能力
尽管大量研究已经证明,过去十多年,国内外已经发表了大量关于肠道菌群与结直肠癌、炎症性肠病、肠易激综合征、肥胖、2型糖尿病、脂肪肝、痛风、抑郁、阿尔茨海默病、自闭症谱系障碍等疾病相关性的研究。这些研究为菌群风险评估提供了重要的科学基础。
但是不同疾病人群、不同疾病阶段、干预前后、治疗响应与不响应人群,往往会呈现出不同的菌群结构和功能特征。
文献差异菌不能直接等同于个体健康风险判断
科研队列和真实检测人群,并不是同一回事
这是行业中一个非常关键、但常被忽略的问题。
科研研究通常会有严格的入组标准。例如,研究者会尽量控制年龄、性别、地区、饮食、BMI、用药史、抗生素使用、基础疾病、采样时间等因素。有些研究会要求受试者在一定时间内不能使用抗生素、益生菌、泻药或特殊药物;有些研究会限制饮食;有些研究会排除合并多种疾病的人群。这样做的目的是尽量减少干扰因素,突出某个疾病与菌群之间的关系。
真实世界中的菌群影响因素更加复杂
真实检测人群:
每一个因素都可能影响肠道菌群。
文献中的差异菌,不能简单搬进报告
在严格科研队列中得到的差异菌,未必能稳定适用于现实世界中的普通检测人群。把文献中的几个特征菌简单搬进报告,用它们来判断疾病高低风险,往往是不可靠,甚至可能完全错误误导后端干预。
★ 好的风险评估模型——核心不仅是算法,更需要高质量的样本数据
很多人在谈疾病预测模型时,容易把重点放在算法上,比如机器学习、随机森林、支持向量机、神经网络、深度学习等。算法当然重要,但在肠道菌群风险评估中,更基础、更关键的因素其实是:模型训练所使用的样本质量和样本代表性。
一个模型能不能识别真实世界中的疾病相关菌群特征,首先取决于它“见过”多少真实、准确、复杂且有代表性的样本。
这里至少包括几个核心问题。
第一,样本是否涵盖了各类人群
肠道菌群受到饮食习惯、地域环境、生活方式、遗传背景、医疗体系、药物使用习惯等多种因素影响。
不同地区和生活方式的人群肠道菌群基线并不完全相同。因此,如果一个模型应尽可能涵盖足够多样的人群,否则可能会出现适配性不足的问题。
第二,样本信息是否准确
疾病状态必须有明确依据,不能只靠用户自述。比如结直肠癌样本最好有病理、肠镜或临床诊断信息支持;糖尿病样本应有血糖、糖化血红蛋白等指标;炎症性肠病应有内镜、病理、临床诊断和疾病活动度信息。
如果标签本身不准确,模型学到的就可能是噪音,而不是真实疾病特征。
第三,样本量是否足够
肠道菌群个体差异极大,同一种疾病在不同阶段、不同用药、不同饮食、不同年龄人群中可能表现出不同菌群特征。
如果样本量太小,模型容易只学到某个小队列的偶然差异,而不是疾病本身在真实世界中的稳定信号。
第四,样本是否覆盖疾病发生、发展、治疗和干预过程
很多疾病不是单一状态。例如:
一个有应用价值的模型,应尽量覆盖这些复杂状态,而不是只比较“健康人”和“典型患者”。
第五,是否有严格的验证
模型不能只在训练数据上表现好,还要在独立测试集、外部队列、不同批次样本、不同时间段样本中验证。否则就可能存在过拟合:在原始研究数据里准确率很高,一到真实用户样本中就失效。
所以,尽管现在有 AI 的出现,如果没有足够大、具有代表性、并且样本数据清晰规范的本土人群数据库,那么疾病预测仍然会面临明显局限。
因此疾病的预测疾病风险评估板块真正的壁垒,不是报告上能不能写出“风险高、中、低”,而是背后有没有足够优质、真实、可追溯、经过验证的人群样本库和模型体系。
除了样本数据本身,风险评估模型还要解决另一个关键问题:它究竟在识别什么。
★ 好的风险评估模型——不是盯着几个菌,而是理解整体微生态特征
模型要识别的是整体,不是单个菌
很多人理解菌群风险评估时,会以为模型就是看某几个菌:会把它想象成一个简单的对应关系:某个“有害菌”升高,风险就升高;某个“有益菌”降低,风险就升高。这样的理解直观,但并不准确。
编辑
肠道微生态是一个复杂网络。疾病相关信号是由多种菌之间的组合关系、相对丰度变化、低丰度关键菌、菌群多样性、生态位变化、代谢功能、炎症相关通路、毒力因子、胆汁酸代谢、短链脂肪酸生成能力等共同构成。
因此,一个成熟模型不应只依赖少数几个肉眼可见的“明星菌”。它需要从整体菌群结构中学习复杂模式。
有些风险信号,甚至高于菌群丰度和关系
某些样本看起来有害菌并不高,多样性也不错,常规菌群构成似乎比较理想,但仍可能隐藏着与特定疾病相关的微生态模式。
这些信号可能来自低丰度菌群,也可能来自菌群之间的组合关系,甚至来自报告正文中没有逐一展示的菌种或功能特征。
以结直肠癌风险评估为例
已有大量研究显示,结直肠癌患者的肠道菌群中可能存在一些相对稳定的特征变化,例如部分具核梭杆菌、脆弱拟杆菌相关毒素型菌株、消化链球菌、微小单胞菌、产毒或促炎相关菌群变化等。
但在真实人群中,不能简单用某一个菌是否升高来判断风险。因为不同个体、不同阶段、不同治疗状态下,菌群表现可能并不一致。
有些人可能某个典型菌升高明显,有些人则可能表现为多个菌群组合的轻度偏移,或者表现为功能通路层面的异常。
如果一个模型基于足够大的真实世界队列,例如大量经临床确认的结直肠癌样本,并结合健康对照、肠道疾病对照、不同年龄和不同干扰因素样本进行训练与验证,它就更有机会学习到疾病相关的综合微生态模式,而不只是机械地识别几个特征菌。
这样更有利它在实战中去判别,比如整体结构是否更接近经临床确认的疾病相关样本。这类模型在实际应用中,才更可能对复杂样本保持较好的敏感性和特异性。
风险提示不能替代临床诊断
当然,即使模型表现较好,也应坚持一个边界:菌群风险评估结果只能提示“需要关注”或“建议进一步检查”,不能直接等同于诊断。比如结直肠癌中高风险提示,应建议结合年龄、家族史、症状、粪便隐血、肠镜等医学检查进行确认,而不是仅凭菌群报告下结论。
为什么“什么疾病都能预测”的报告反而要谨慎看待?
风险评估项目越多,不一定代表报告越成熟
消费者需要特别注意一个现象:有些菌群检测报告看起来功能非常丰富,几乎什么疾病都能评估,几十种甚至上百种风险都能给出结论。表面上看,这样的报告似乎更全面,但从专业角度看,反而需要谨慎。
原因很简单:不是所有疾病都已经具备成熟、稳定、可用于真实人群评估的菌群模型基础。
不同疾病的菌群证据基础并不相同
有些疾病与肠道菌群之间的关联证据较强,样本积累较多,模型开发和验证相对更有基础。
但有些疾病目前仍处于早期研究阶段,文献结果不一致,队列样本较少,混杂因素很多,尚不足以支持面向消费者的风险预测。
明确的风险结论,需要透明的模型依据
如果一个报告对很多疾病都给出非常明确的高低风险判断,但没有说明模型来源、样本量、适用人群、验证结果和解释边界,那么它很可能不是基于真实世界大样本模型,而只是引用了文献中报道过的一些差异菌或相关菌。
这种做法的问题在于:文献中的差异菌通常来自特定研究条件下的特定队列。它们可以作为科学线索,但不一定能直接作为个体风险判断依据。
如果把多个疾病文献中的特征菌简单叠加,就可能导致很多用户在报告中同时出现多种疾病高风险。这样的结果看似敏感,实际上特异性可能很差,容易造成不必要的焦虑,也可能误导后续干预方向。
专业,是对边界的克制
专业的做法应该是:
消费者应该如何理解这一板块
对于消费者而言,看到菌群报告中的疾病风险评估,既不必恐慌,也不能完全忽视。
比较合理的态度是:把它作为一种基于肠道微生态数据的健康风险提示。
如果某项风险偏高:
低风险不等于绝对没有问题,高风险也不等于已经患病。
菌群模型评估的是一种微生态模式与疾病状态的相似性或相关风险,它的意义在于帮助人们更早关注潜在问题,并为进一步检查、生活方式调整和健康管理提供参考。
行业应该比拼证据深度,而不是报告项目数量
肠道菌群检测进入应用阶段后,报告内容越来越丰富是趋势。有价值的竞争,不应该是谁能写出更多疾病名称,而是谁能在每一个评估项目背后建立更扎实的证据链。
一个负责任,科学,公平的检测体系(CNAS认可实验室的准则),应该敢于承认边界:
这样的报告看起来可能没有那么包罗万象,但专业价值反而更高。
从风险评估的实际价值来看,报告项目的数量并不是唯一衡量标准。相比覆盖多少病种,更值得关注的是:每一项提示是否有清晰依据,是否能提供合理的下一步建议,是否有助于减少误判、过度解读或不必要的干预。
总体来看,肠道菌群疾病风险评估是一个很有前景、也很有技术壁垒的方向。更值得关注的是,从科研发现走向真实世界应用,可能需要跨过样本质量、样本规模、模型验证、本土适配、混杂因素控制和临床解释边界等多道门槛。
这才是肠道菌群检测报告第二层壁垒的核心。
在肠道菌群检测报告中,
除了菌群谱和疾病风险评估之外,
第三个越来越重要的板块,
就是营养代谢与功能评估。
肠道菌群报告的第三层壁垒:营养代谢评估=看菌推营养?
很多报告会提示维生素合成能力、氨基酸代谢、短链脂肪酸生成能力、胆汁酸代谢、脂质代谢、膳食纤维利用能力、蛋白质发酵倾向、肠道屏障相关功能等内容。
这一方向是有大量询证依据的,而且这一块菌群有着绝对的优势,会做的越来越好。因为肠道菌群并不是被动存在于肠道里的“微生物名单”,它们本身就是一个活跃的代谢器官。
大量研究已经证明,肠道菌群参与膳食纤维发酵、短链脂肪酸生成、B族维生素合成、氨基酸代谢、胆汁酸转化、色氨酸代谢、胆碱和肉碱代谢、植物多酚转化等过程。这些代谢活动与能量利用、肠道屏障、免疫调节、炎症状态、神经递质前体、血糖血脂代谢等都有密切关系。
因此,通过菌群数据去评估一部分营养代谢能力,是有科学基础的。但这里必须强调一个关键点:菌群报告中的营养代谢评估,更合理的解释评估的是菌群相关代谢潜力或菌群功能倾向。
有价值的营养评估,看三组数据如何互相校准?(谷禾的菌群营养评估结合三组数据开发)
注:谷禾的菌群营养评估结合的三组数据是指:肠道菌群数据、粪便代谢组数据、血浆代谢组数据。
更高质量的肠道菌群营养代谢评估,不应只停留在“某个菌多,所以某种营养代谢好”这种层面,而应该尝试建立菌群、粪便代谢物、血液代谢物和饮食信息之间的对应关系。
这里面至少有三类重要关系。
第一,菌群功能潜力与粪便代谢物是否一致
比如报告提示丁酸产生菌不足,同时粪便中丁酸水平也偏低,那么可以更有信心地判断肠道短链脂肪酸生成环境不足。
反之,如果丁酸产生菌不低,但粪便丁酸低,就要考虑饮食纤维摄入不足、吸收增加、样本时间点或检测差异等因素。
第二,粪便代谢物与血液代谢物是否一致
例如肠道蛋白质腐败发酵增强时,粪便中某些酚类、吲哚类、胺类代谢物可能升高;其中部分代谢物如果进入血液并进一步影响宿主代谢,血液中也可能出现相关变化。但如果只在粪便中高、血液中不高,临床意义就可能不同,更多提示局部肠腔环境变化。
第三,菌群代谢能力与宿主营养状态是否一致
比如菌群提示B族维生素合成潜力较弱,但血液中相关维生素指标正常,可能说明饮食摄入或补充剂足够;如果菌群功能弱、饮食摄入不足、血液指标也偏低,那么营养干预的依据就更充分。
这种多组学和临床营养指标的互相验证,才是营养代谢评估真正走向成熟的方向。
营养代谢评估的专业价值,在于指导方向而不是替代临床营养诊断
肠道菌群营养代谢评估真正有价值的地方,是帮助我们理解一个人的肠道生态更偏向哪种代谢模式。
这些信息对个性化营养干预很有帮助。但它的正确定位应该是:为饮食结构优化、营养补充策略、肠道微生态干预和后续检测提供依据,而不是直接诊断某种营养缺乏或疾病。
第三层壁垒的核心:从“菌有什么功能”走向“功能是否真正影响宿主”
总结来说,肠道菌群报告中的营养代谢评估,是一个有科学依据、也很有应用潜力的方向。
但它的技术门槛并不低。
因此,营养代谢板块不是报告中“锦上添花”的装饰内容,而是检验一个菌群检测体系是否真正理解肠道微生态功能的重要部分。
专业的报告可以告诉用户:你的肠道菌群具备怎样的代谢倾向,这种倾向与饮食、粪便代谢物、血液营养指标之间是否一致,以及下一步应如何更科学地验证和干预。
对消费者而言,最重要的是记住一句话:肠道菌群可以帮助评估营养代谢环境,但不能单独定义人体营养状态。
为什么第一次/基线检测 尤其重要?
第一次基线肠道菌群检测的价值:建立可靠参照系以指导后续干预策略。
很多健康指标可以多次检测后再建立趋势,但肠道菌群的首次检测有特殊意义。因为一旦开始系统干预,原始状态可能很难再被还原。
长期服用益生菌、使用抗生素、改变饮食结构、接受粪菌移植或重大疾病治疗后,菌群生态可能发生持续改变。此时再检测,只能反映干预后的状态,而无法回答“我本来是什么样”。
因此,第一次基线检测,可以为后续观察和比较提供一个重要参照。
编辑
第一次基线检测就像一张干预前照片
它不一定完美,也不代表永久状态,但可以记录个体在某一时间点的肠道菌群结构特征和一定程度的功能潜力,呈现当时的微生态背景。
比如菌群多样性和稳定性如何,优势菌群结构是否与年龄、地域、饮食和健康状态大致匹配,是否存在明显偏离常见健康人群范围的模式,短链脂肪酸产生菌、黏液层相关菌、蛋白发酵相关菌、潜在条件致病菌、炎症相关菌群等是否处于值得关注的水平。
为后续观察、干预和复测提供参照
如果一个人未来出现症状变化、接受抗生素治疗、长期腹泻或便秘、体重快速变化、慢病治疗、营养干预或粪菌相关治疗,基线数据可以帮助判断菌群变化的幅度和方向。
对于科研和临床随访而言,基线更是分析因果链条和干预效果的基础。
在商业场景中,忽视基线会带来明显问题
机构可能先通过报告制造异常,再推荐干预,然后用干预后某些指标变化证明产品有效。但如果没有真实干预前基线、没有对照、没有标准化采样和统计分析,这种“前后对比”很容易受到自然波动、饮食变化、检测误差和选择性展示影响。
科学的基线检测应当先于干预,并尽量独立于产品销售。
为什么后端干预前必须重视基线?
干预越强,越需要先看清原始状态
肠道菌群相关干预包括饮食调整、膳食纤维增加、益生菌补充、益生元补充、合生元、后生元、抗生素使用、药物治疗、运动和睡眠改善,甚至粪菌移植等。
这些干预方式的强度差异很大,潜在影响也不同。一般来说,干预越强,越需要在干预前获得可靠基线。否则,后续干预就像在没有地图的情况下改变一个复杂生态系统:既不知道哪里真正需要调整,也很难判断调整后是否真的变好了。
没有基线,容易把正常差异误判为异常
举例来说,一个人检测前长期高纤维饮食,短链脂肪酸产生菌丰富,菌群多样性较好,Akkermansia、Faecalibacterium、Roseburia 等相关菌群处于适宜范围。
但如果采用了不适配的人群参考值,或者用过于简单的评分体系判断其“菌群低分”“缺乏益生菌”,就可能引导其进行并不必要的补充。几个月后,即使检测指标发生变化,也很难判断这种变化是否真的有益;如果症状没有改善,还可能进一步造成误解甚至过度干预。
警惕“检测—焦虑—购买”的闭环
再如,一个人原本并无明显肠道疾病风险,只是因为看到“菌群年轻化”“提升免疫力”等广告接受检测。
若报告故意调高某些“有益菌”参考阈值,使多数人看起来不达标,再配套推荐产品,就容易形成“检测—焦虑—购买”的闭环。此时检测不是科学评估,而是销售脚本的一部分。
高强度干预尤其不能只凭单次商业检测决定
还有更需要谨慎的例子是粪菌移植。粪菌移植在复发性艰难梭菌感染等特定疾病中已有较明确证据,但在广泛大健康、减重、美容、抗衰、情绪改善等场景中仍需严格限定适应证和风险评估。
如果一个人原本菌群分值不错、没有明确临床适应证,却因为错误参考范围或夸大解读而接受粪菌移植,可能破坏自身已有土著菌群生态,引入不可预测的微生物和代谢风险。粪菌移植不是普通保健项目,更不能成为基于单次商业检测结果的轻率选择。
基线的作用,是为干预设置目标和边界
首次基线检测可以在这些场景中发挥“刹车”和“参照”作用。
它让个体和专业人员知道:
因此,基线检测不是为了让所有人都进入干预流程,而是为了让干预更有依据、更有边界,也更容易被客观评估。
编辑
肠道菌群不是越多越好,也不是某个明星菌越高越好
“好菌越多、坏菌越少”是一种过度简化
市场宣传中常见一种简单化表达:某种菌是“好菌”,越多越好;某种菌是“坏菌”,越少越好。这样的说法便于传播,却容易误导。
肠道菌群是生态系统,不是单一成分表。许多细菌的意义取决于菌株水平、宿主背景、整体生态位置和代谢环境。
“明星菌”也不能脱离整体生态判断
即便是被广泛关注的有益相关菌,也不意味着所有人都需要补充或越多越健康。
以 Akkermansia muciniphila 为例,它常被称为黏蛋白降解菌,与肠黏液层代谢、代谢健康等研究方向相关。
在一些研究中,Akkermansia 的相对丰度与代谢指标改善相关,因此成为商业宣传中的“明星菌”。但这并不代表每个人都需要人为提高它,更不代表它越高越好。
若一个人的 Akkermansia 已经处在较高水平,同时整体菌群多样性良好、肠道症状不明显、炎症相关指标无异常,盲目追求进一步提升并没有充分科学依据。更极端地说,如果只看某一项指标而忽视整体生态,可能对个体产生错误引导。
乳酸菌、双歧杆菌也不是人人都要长期补充
同样,乳酸菌、双歧杆菌等常被公众理解为绝对“好菌”。但成人肠道中双歧杆菌丰度受年龄、饮食、地域和个体差异影响很大。
某些乳酸菌产品也可能并不长期定植,更多是短期代谢或免疫调节作用。对于一个本身菌群结构较好的人,长期、重复、大剂量补充多个益生菌产品,不一定带来额外收益,反而可能造成检测解释混乱、症状波动或经济负担。
条件致病菌也不能简单理解为“检出就是有病”
许多潜在致病菌或机会致病菌可以低丰度存在于健康人群中。判断其意义需要结合丰度、毒力基因、宿主症状、炎症指标、免疫状态和临床背景。将“检出某菌”直接等同于“感染”或“需要治疗”,是不严谨的。
因此,首次基线检测的一个重要作用,是帮助个体认识自己的菌群是在整体生态中呈现怎样的状态,而不是被单一明星菌或单项异常牵着走。
报告解读应坚持科学、克制和个体化
肠道菌群报告的难点不在于列出菌名,而在于解释。解释过少,用户看不懂;解释过度,又容易造成误导。
科学解读应坚持三个原则:基于证据、结合背景、承认不确定性。
基于证据:不能把相关性直接说成诊断结论
基于证据,意味着不能把单篇研究、动物实验或体外实验直接转化为个人诊断。许多菌群与疾病之间是相关关系,不一定是因果关系。即使某菌在某疾病患者中平均升高,也不代表某个健康人该菌升高就会发病。
结合背景:同一个结果,在不同人身上意义不同
结合背景,意味着要询问或记录受检者的年龄、饮食、排便、近期药物、疾病史和干预史。
承认不确定性,意味着报告要说明检测边界
粪便菌群主要反映肠腔和脱落菌群,还有部分肠黏膜菌群;DNA 检测不能区分活菌和死菌;相对丰度受其他菌变化影响,不等同于绝对数量;一次检测不能反映长期趋势;菌群功能潜力不等同于实时功能表达。
合理管理建议
个体化并不等于无限定制产品,而是基于个人基线和背景提出合理建议。
对于大多数人,最基础、证据更稳健的建议仍然是:增加多样化植物性食物,保证足够膳食纤维,减少长期高油高糖高加工食品,规律作息,适量运动,避免不必要抗生素,出现持续症状时及时就医。
肠道菌群检测在大健康领域的合理定位
在大健康领域,肠道菌群检测最适合扮演三个角色:教育工具、风险提示工具、随访比较工具。
作为教育工具,它可以让人更直观地理解饮食、药物、生活方式与肠道生态的关系。很多人在看到自己膳食纤维相关菌群不足后,更容易接受增加植物性食物的建议。
作为风险提示工具,它可以发现一些值得关注的模式,例如多样性明显降低、机会致病菌显著升高、产丁酸菌群不足、蛋白发酵相关特征突出等。但这些提示需要结合临床和生活背景,不应直接转化为疾病诊断。
作为随访比较工具,它可以用于观察干预前后趋势。尤其当同一实验室、同一方法、相似采样条件下多次检测时,纵向比较往往比不同机构之间横向比较更有意义。
行业规范化需要哪些努力?
肠道菌群检测行业要健康发展,需要从多个层面提升规范性。
编辑
实验室层面
应建立标准化采样、运输、DNA 提取、建库测序、生信分析和报告审核流程,持续进行质控和能力验证。对于关键性能指标,如重复性、检出限、批间差、污染控制、注释准确性等,应有内部验证和记录。
数据库层面
应建设大规模、本土化、结构化、可追溯的人群数据库,并对不同年龄、地域、性别、饮食和健康状态进行分层。数据库建设除了追求样本数量外,还应重视元数据质量。
模型层面
应提高透明度和可验证性。健康评分、风险模型和推荐算法应避免黑箱化,至少应在报告或技术说明中解释基本逻辑、适用范围和局限性。
报告层面
应使用审慎语言,区分科研关联、健康参考和临床诊断。报告不应夸大,不应制造焦虑,不应将所有偏离都导向产品购买。
监管和行业共识层面
需要推动术语标准、质控标准、参考数据库建设规范、报告表达规范和商业宣传边界。肠道菌群检测的发展前景不应建立在短期销售上,而应建立在科学可信和长期复测价值上。
肠道菌群检测的价值,既不宜被过度放大,也不应被简单忽视。它不能替代临床诊断,也不能仅凭一次检测就判断一个人的整体健康状况,更不应成为商业干预的唯一依据。不过,如果建立在规范实验室、严格质量控制、较大规模本土数据库以及专业解读的基础上,它仍然可以为个体了解自身微生态状况提供一定参考。
首次基线检测的意义,正在于记录个体在干预前相对原始的微生态状态。无论是后续的饮食调整、药物使用、益生菌补充,还是疾病治疗和健康管理,都需要一个可比较的起点。没有基线,很多个体化建议就缺少参照;没有客观数据库和质量体系,报告中的分数也容易失去实际意义;如果缺少科学边界,检测还可能在无形中增加不必要的健康焦虑。
因此,真正有价值的肠道菌群检测,更应该:
当行业更加重视科学依据、质量控制和长期随访,肠道菌群检测才有可能在大健康和精准健康管理中发挥更稳健的作用。对个体而言,报告上的某个分数并不是最重要的,真正值得保留和关注的,是基于真实基线建立起来的、长期可比较的微生态参考。
新一代肠道菌群检测将不止着眼于肠道菌群的构成和变化,而是和其他组学数据一起绘制全面的人体健康数字画像,借助海量的样本和多维度的高通量数据来揭示纷繁复杂的健康状况。
通过将肠道菌群和粪便代谢组、血浆代谢组、蛋白组、血液检测、临床记录和生活问卷等这些不同维度的数据在隐空间进行对齐,彻底释放肠道菌群中蕴含的丰富健康信息,也将让我们更加了解肠道菌群的真实边界。
也许肠道菌群能告诉我们的比我们自己了解的要多得多,只是这一切都要用真实可靠的海量数据来构建。谷禾正在构建庞大的队列数据集,推动肠道菌群的研究和应用向全新的领域前进,迎来属于肠道菌群的chatGPT时刻。
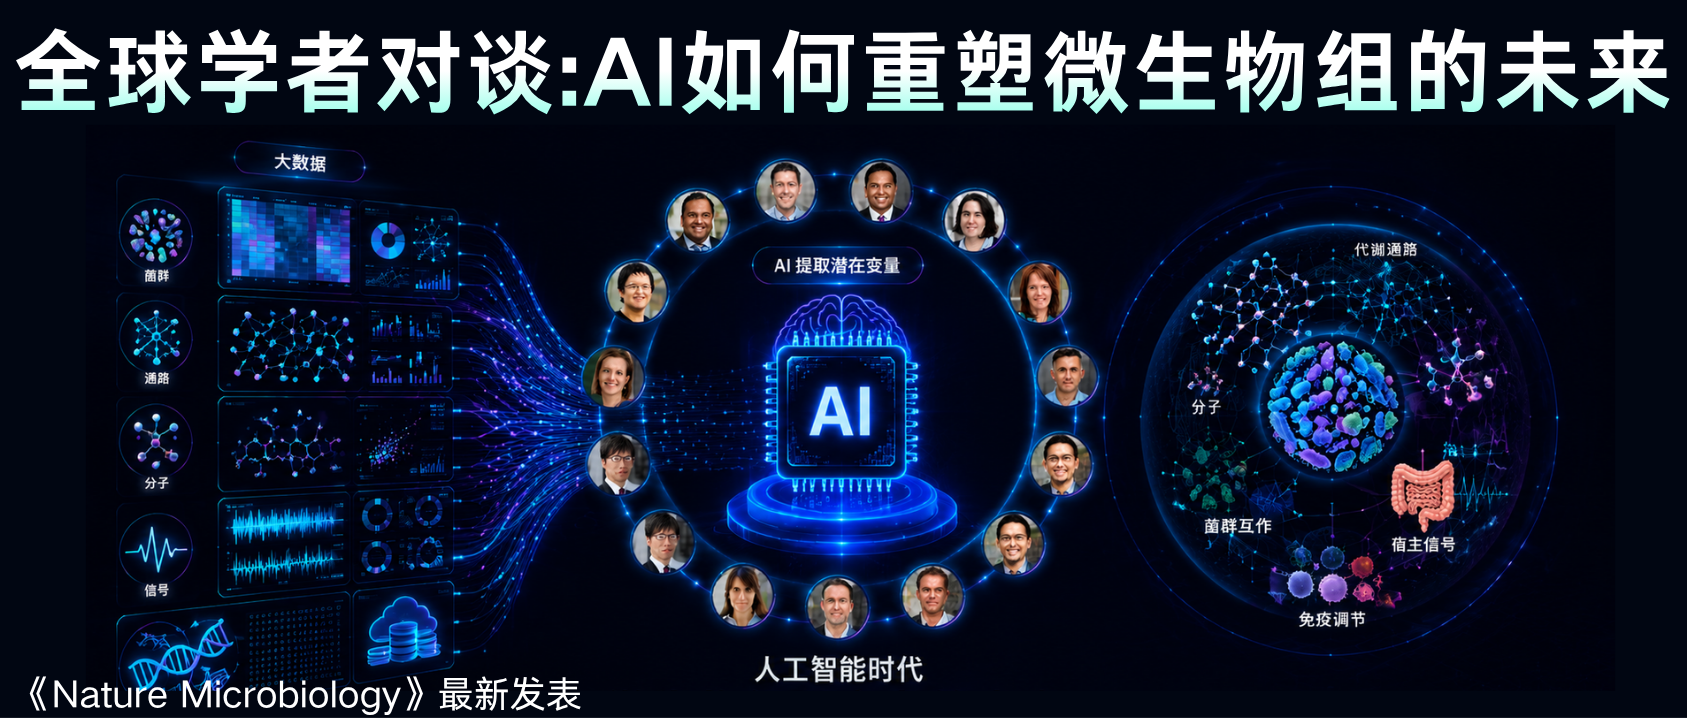
谷禾健康
人工智能(AI)几乎进入了所有行业,代码秒生成、数据处理效率翻倍,在几秒钟内完成过去需要几小时甚至几天才能完成的信息处理工作。那么,这股AI浪潮会重塑生命科学与医学吗?
放在微生物研究领域,答案是肯定的。更值得讨论的是, AI 正在以什么方式进入微生态研究,又会把这个行业推向哪里?
近日,《Nature Microbiology》邀请多位全球微生物组领域研究者,讨论 AI 对微生物组研究的影响。
这些科学家的观点并不单一。他们既看到了 AI 在复杂数据分析、多组学整合、临床变量提取、代谢物发现、疾病预测等方面的巨大潜力,也极具前瞻性地强调:AI 不是魔法,它不能绕过数据质量、实验验证和科学判断。
这篇讨论很有价值,它没有把 AI 描述成一个万能答案,也没有把 AI 看成科研的威胁。AI 正在成为微生态研究的一种新基础设施:它帮助人类更快地看见复杂数据中的线索,帮助科学家提出更有价值的问题,也帮助科研、临床、大健康和产业应用之间建立新的连接。
而在这背后,一个更加清晰的行业趋势正在出现:AI 能让微生态研究跑得更快;而一场关于数据与真实世界场景的终极较量,才刚刚开始。
菌群研究,本质上是在研究一个高度复杂的生命生态系统。菌群之间会相互竞争、协作,也会影响代谢产物、免疫反应、肠道屏障、炎症水平,甚至与药物反应、饮食结构和疾病进展发生联系。
以色列魏茨曼科学研究所的Eran Elinav教授提到,微生物组领域可以从 AI 革命中受益很多。
因为这个领域面对的正是复杂的微生物群、跨物种相互作用,以及生物活性代谢物与其微生物来源之间的关系。
也就是说,AI 最适合介入的地方,正是人类很难直接看清的复杂关系。
过去,研究者经常是先观察现象,再逐步寻找解释;而现在,AI 可以帮助科学家在海量数据中提前发现可能被忽视的线索,让研究从人工寻找线索进入机器辅助提出假设的阶段。
在微生态研究中,数据从来不缺。
宏基因组、代谢组、蛋白组、转录组、免疫指标、临床变量、电子病历、饮食记录、随访数据……这些数据越积越多,那么怎么样从大量信息中找到重要的部分?
从海量候选中,找到最值得验证的信号
美国匹兹堡大学的 Reinhard Hinterleitner 研究微生物代谢物如何影响免疫反应。
他提到,现在很多时候最难的并不是收集数据,而是判断哪些代谢物最可能具有生物活性,并且与疾病真正相关。
在过去,耗费无数科研人员大把青春的,往往不是实验本身,而是先观察到现象,再在长长的候选名单里“撞大运”去寻找解释… 在生命科学里,重要的是找到哪些差异值得继续深入研究下去。如果 AI 能够帮助科学家更快完成筛选,科研效率就会发生实质性变化。
这正是 AI 能降维打击的地方。
AI 可以从很长的候选名单中,帮助研究者优先筛选更值得验证的代谢物。它不是直接替科学家完成结论,而是让研究者更快把注意力集中到最有可能产生价值的方向上。
AI正在扩大微生态研究的搜索半径
Karen P. Scott 教授也提到,随着 DNA 测序数据大量产生,分析工作耗时巨大,很多数据甚至还没有被充分挖掘。
机器学习工具可以帮助研究者更高效地从巨大数据集中发现新的抗菌蛋白和细菌素。
未来,研究者不一定只依赖序列同源性,而可以结合蛋白质三维结构和靶点相互作用,寻找具有潜在活性的序列。
这说明 AI 在微生态领域的应用,不仅停留在分析菌群结构,还可能深入到新型抗菌物质发现、微生物功能预测和药物开发的早期阶段。
编辑
从这个角度看,AI 正在扩大微生态研究的搜索半径。过去我们只能在有限区域内寻找答案;现在,AI 可以帮助人类把更多被忽略的角落纳入视野。
AI 的本质,不是消灭科学家的工作,而是把科学家从科研高级打字员中解救出来,当工具把寻找线索的速度拉到极致时,他们可以把精力留给科学直觉。
一种菌的变化,可能只是结果,不一定是原因;一个代谢物的升高,可能与疾病相关,但不一定就是治疗靶点;同一种菌群结构,在不同饮食、不同年龄、不同疾病背景下,也可能意味着完全不同的事情。
这也是为什么 AI 的价值不仅是算得更快,而是整合得更多。
编辑
比利时根特大学Gerard Bryan Gonzales 提到,AI 可以帮助科学家从大数据中提取潜在变量,在降低维度的同时保留生物学意义。这些潜在变量可能是共同出现的菌群组合,也可能是通路、分子特征或更复杂的生物信号。
从单个指标,走向多组学网络
这句话背后的意义是:AI 可以帮助研究者不再孤立地看某一个菌、某一个指标,而是把微生态系统看成一个整体。
编辑
比利时安特卫普大学的 Sarah Lebeer 也提到,AI 正在帮助微生物组研究整合不断扩大的多组学数据,并把它们组织成更连贯的生物网络。
虽然她重点研究的是阴道微生物组,并提醒不同生态位之间不能简单套用模型,但她的观点同样适用于整个微生态领域:AI 的价值不只是发现差异,而是帮助我们建立网络化、系统化的理解。
未来,研究者更需要理解网络:菌群如何影响代谢物,代谢物如何作用于宿主细胞,宿主免疫状态又如何反过来影响微生态结构。
从看见差异到理解关系,这是微生态研究走向成熟的重要一步。
从静态结构,走向动态演化
编辑
葡萄牙古尔本基安分子医学研究所的 Isabel Gordo 则进一步提醒我们,肠道菌群并不是静止不变的结构。时间序列宏基因组测序已经显示,肠道中的菌株会在宿主体内持续变化,甚至发生快速演化。
是什么驱动了这种进化,以及肠道细菌中特定遗传改变在多大程度上可以作为某种疾病背景的生物标志物,都是具有挑战性的开放问题。
AI 模型可用于挖掘并整合过去一个世纪在微生物遗传学中积累的知识,以及过去十年的微生物组数据,从而帮助回答这一挑战。
这种转变会影响整个行业。
编辑
如果说基础研究关注的是机制,那么临床和真实世界更关注的是:这些研究发现能否在人群中得到验证?
在这方面,AI 的作用同样明显。
当菌群数据遇见电子病历
编辑
梅奥诊所的 Purna Kashyap 教授提到,AI 已经改变了他们从电子健康记录中提取临床结局和复杂临床变量的方式,尤其是在大规模人群数据中。这有助于更好地识别与疾病和结局相关的微生物信号,也可以帮助寻找可能被微生物影响的宿主通路。
这意味着,微生态研究正在从实验室数据走向真实世界数据。
过去,科研可能主要围绕样本和测序结果展开;现在,如果菌群数据能与电子病历、临床指标、生活方式、饮食、用药、随访结局结合,就可能为疾病风险评估、治疗反应预测和个体化健康管理提供新的参考维度。
从算法预测到生物学验证
编辑
日本大阪大学的 Kiyoshi Takeda 教授也提到,微生物与宿主之间的相互作用发生在一个高度复杂的系统中。
AI 可以通过患者和健康个体之间的比较分析,帮助识别疾病相关的肠道微生物、微生物来源的代谢物,以及这些代谢物可能作用的宿主细胞或受体。随后,研究者可以通过小鼠模型等生物学研究验证这些预测,并推动其向人类疾病应用转化。
AI 先帮助发现可能的关联;
实验进一步验证机制;
临床研究再判断它能否用于人群。
AI 让医学和微生态研究之间多了一座桥。
编辑
爱尔兰科克大学的 Niall Patrick Hyland 关注宿主-微生物界面,尤其是微生物组如何影响肠道生理。他认为,随着实验数据越来越复杂,AI 可以更客观地识别生理读数中的模式,减少人为偏差,发现原本难以辨认的信号。
同时,AI 在模拟微生物组与药物、外源化合物相互作用方面也有潜力,有助于理解个体反应,并推动微生态治疗的发展。
这一点也很重要。
这些问题,都可能与微生态有关。AI 的作用,就是帮助我们把这些复杂因素重新组织起来。
AI 对微生态研究的影响,并不只体现在数据分析上。它也在改变科研工作的组织方式。
AI正在进入科研的应用流程
编辑
哈佛医学院的 Marco Jost 提到,机器学习早已是微生物组研究中的常用工具,尤其是在大型组学数据中提取生物信号。
但近几年大语言模型带来的变化,更多发生在科研行为本身:它们可以自动化一些繁琐的实验室任务,生成代码初稿,帮助研究者快速了解陌生领域。
编辑
杜克大学的 Lawrence A. David 也提到,AI 可以放大科研努力。
在他的实验室中,AI 不仅用于管理复杂项目流程,还能把成千上万条食品成分清单转换成用于基因组数据库的精确拉丁物种名称。过去这些任务可能需要研究者花费大量时间,现在可以大幅加速。
这些例子说明,AI 正在进入科研工作的底层流程。
它可以整理资料、清洗数据、管理流程、辅助编程、提取元数据、识别错误、汇总文献。看似都是辅助工作,但长期来看,它会改变科研团队的时间分配。
科学家的价值重心正在转移
未来,AI 承担更多基础工作后,人类科学家的价值会更加集中在提出问题、判断方向、设计实验和解释结果上。
编辑
Lawrence A. David 因此提出一个值得思考的问题:既然 AI 越来越擅长写作、编程和统计分析,我们应该如何重新训练未来科学家?
他的答案是,未来更应该重视科学素养,包括:
这句话对所有行业都有启发。
在万物皆可被大模型自动化的时代,当工具越来越强,完成某个技术动作不再是门槛,重要的是是否知道应该把工具用在哪里;难的是提出连 AI 都没想到的问题;当 AI 给你一个漂亮答案时,你依然有底气去质疑它是否靠谱。
AI 时代,科学家的门槛并没有降低,只是门槛换了位置。
谈 AI 的价值,并不意味着忽略它的边界。相反,越是步入生命科学和健康领域的深水区,越需要清楚地知道 AI 能做什么,不能做什么。
Eran Elinav 教授提醒,AI 的表现取决于输入数据的质量。它最多可以生成更有信息量的相关性、关联和预测,但理解因果关系和分子机制,仍然需要严谨的实验验证。
这是微生态研究中非常核心的一点。
相关性,不等于因果性
某种菌和某种疾病同时出现,不代表这种菌就是病因。某个代谢物和某种健康状态相关,也不代表它就是干预靶点。AI 可以告诉我们,这里可能有信号,但不能自动证明这就是原因。
Purna Kashyap 也提醒,微生物组数据高度稀疏、维度高、非常依赖具体背景。如果再叠加批次效应、研究设计差异和功能注释不完整,AI 模型可能会过拟合,也可能识别出没有生物因果意义的相关性。
模型越复杂,不一定越可靠
编辑
Sean M. Gibbons 的观点更加直接。他认为,对于许多只有几百到几千个样本的生物医学数据集,训练新的深度学习模型在统计上并不总是可行。很多时候,参数更少的传统机器学习模型反而更合适。
他还提醒,不能盲目相信 AI 热潮,而应该用人的判断力谨慎地使用 AI。
AI 能提高效率,但不能替代证据等级。
AI 能发现模式,但不能自动完成因果解释。
AI 能生成结论的雏形,但不能承担科学判断的责任。
在微生态领域,这一点尤其重要。
越复杂的领域,越需要强大的工具;也越需要清醒的边界。
尽管科学家们不断提醒 AI 的边界,但他们对 AI 推动微生态研究的未来仍然保持积极态度。
疾病关联 → 治疗反应预测
编辑
希腊亚历山大·弗莱明生物医学科学研究中心的 Vasiliki Koliaraki 提到,AI 正在改变我们研究肠道微生物组的方式。
基于宏基因组数据训练的机器学习模型,已经可以识别与炎症性肠病诊断和治疗反应相关的微生物模式。
未来,这些能力有望进一步帮助临床前研究,改进我们对微生物组—宿主相互作用的建模,预测哪些微生物可能推动肠道疾病,并设计更有针对性的干预策略。
多组学模式 → 机制理解
编辑
密歇根州立大学的Robert A. Quinn 则从代谢组学角度谈到,他们实验室长期使用 AI 工具分析复杂多组学数据,如今更依赖 AI 解释大规模代谢组数据,发现人工难以识别的微生物化学模式。
他还提到,深度学习方法正在被用于预测多组学数据中的生物关系,并且在识别模式方面表现出优于传统统计分析的潜力。
这些观点共同指向一个趋势:微生态研究正在从描述走向预测,再进一步走向机制理解。
构建“人体-微生物”复合模型
编辑
来自阿根廷立陶宛国立大学的Gabriel Vinderola 提到,他们参与的 Global Microbiome Conservancy 汇集了来自非洲、亚洲、南美和欧洲二十多个国家研究者,关注全球人类微生物组,并加强历史上代表性不足人群的研究能力。
AI 和机器学习工具可以整合宏基因组、分离菌株基因组、代谢组、免疫标志物和临床表型,同时帮助拆解生活方式、饮食、地理和宿主遗传等因素之间的相关驱动关系。
他的判断很有代表性:微生态研究正在从以描述为主,转向预测性、机制性,甚至生成式的人体metaorganism模型。
注:这里的metaorganism,可以理解为人与体内微生物共同构成的复合生命系统。
当 AI 越来越强,很多人会自然把注意力放在算法、模型和算力上。
在微生态领域,稀缺的东西可能还不只是算法
编辑
Paul W. O’Toole 教授提到,他们已经多年使用监督式机器学习,识别基因组或宏基因组中能预测表型和宿主特征的关键特征。
他们还使用自然语言处理进行元数据整理,筛选超过 12000 条生物样本记录并标记错误;同时,也在利用粪便宏基因组数据进行结直肠癌检测,并通过隐私保护的联邦 AI,让患者元数据不离开诊所。
这说明,AI 要进入医学和健康场景,数据治理、隐私保护、样本质量、元数据标准化同样重要。
没有这些基础,AI 很难稳定发挥价值。
Sean M. Gibbons 也提醒,大模型并不适合所有场景。对于许多生物医学数据,样本量、参数量和统计可行性之间需要匹配。
模型越复杂,不一定越好;在数据不足或结构不清晰的情况下,复杂模型反而可能带来更大的不确定性。
编辑
微生态行业的关键能力正在重新排序
这给整个行业一个非常现实的提醒:
AI 不是把少量、混乱、低质量的数据变成高质量科学的机器。它只是把数据中的信号和问题,一起放大。如果喂给它的是贫瘠与混乱,它撬动的绝非科学的真相,而是一场更大规模的统计学灾难。
因此,在 AI 时代,微生态行业的关键能力会重新排序。
第一,持续产生高质量数据。
第二,建立标准化流程。
第三,连接真实世界场景。
第四,把菌群数据与饮食、临床、代谢、免疫、生活方式、长期随访结合。
第五,把 AI 发现的模式转化为专业、审慎、可验证的解释。
这些是微生态行业真正的底层能力。
回到产业层面,肠道菌群检测的意义也需要被重新理解,检测是微生态数据体系的重要入口。
AI再聪明也是吃喂进去的数据
数据对于科研、大健康、临床研究、营养干预、产品开发、疾病风险管理和个体化健康服务,都可能具有长期价值。
编辑
数据连接真实场景,产生长期价值
当然,数据的价值不只是多。也需要的是长期、真实、标准化、可解释,并且能够与具体健康场景连接。
AI 会提高微生态研究和应用的效率,但真正支撑行业长期发展的,仍然是数据积累、标准体系、场景转化、科学验证等。
AI正在推动微生物学进入一个发现更快、理解更深的阶段,也让大量沉睡在数据中的线索重新显现,推动了整个研究视角的升级。
菌群检测行业的长期价值,建立在可信的数据之上。随着检测标准、数据体系和验证路径日益完善,当高质量数据持续沉淀,微生态领域将形成更清晰的证据链,这也为产业上下游协作提供更扎实的基础。
谷禾也将继续围绕这一入口,通过长期、真实、标准的动态数据积累,将 AI 的算力与高质量的真实世界数据深度耦合,推动微生态研究成果更稳健地走向科研转化、产业协同和大众健康应用。
主要参考文献:
Sharma, A. Voices of microbiome researchers in an artificial intelligence era. Nat Microbiol (2026). doi.org/10.1038/s41564-026-02359-7