-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
早晨刷牙时,你会不会偶尔看见泡沫里带着一点血丝?和人近距离说话前,会不会担心自己有口臭?体检报告里的葡萄糖、胆固醇总能引起重视,可牙龈反复出血、晨起口苦、口气不清新,却常常被一句“最近上火了”轻轻带过。
长期以来,我们对口腔健康的判断方式相当”粗放”:牙不疼就是没病,牙龈偶尔出血是”上火”,口臭是”肠胃不好”。等到牙疼得睡不着、牙齿松动才去看医生,往往已经到了牙周炎晚期、牙槽骨吸收不可逆的阶段。
问题在于,在症状出现前,口腔微生态可能已发生显著变化。口腔并非无菌空间,而是人体仅次于肠道的第二大微生物群落。健康成年人口腔中大约有700余种细菌,以及真菌、病毒和古菌等,总量可达数百亿。它们分布于唾液、舌苔、牙菌斑、龈沟和黏膜等不同生态位,通过竞争、共生与拮抗形成复杂的微生态系统:部分维持口腔稳定,部分则与龋齿、牙周炎和口臭等相关。
菌群失衡往往早于症状出现——龋齿在真正形成龋洞前,可能已经历了持续的酸性侵蚀;牙周炎从刷牙出血到牙齿松动,中间可能有很长一段没有明显痛感的时间;口臭也并不总是“吃了重口味食物”那么简单。它们背后常常藏着同一个被忽略的变化:口腔里的微生物群落,正在失去原本的平衡。
更值得重视的是,口腔并不是与身体其他部位隔绝的空间。它既是食物进入消化道的第一站,也是呼吸道的门户。口腔局部长期存在的细菌和炎症,可能经由吞咽、微量吸入或短暂入血等途径,与代谢、心血管和免疫相关问题发生联系。它提醒我们:管理口腔,不能只在牙疼时才开始,也不能只把目光放在一颗牙上。
口腔菌群检测尝试把肉眼看不见的微生态变化转化为可阅读的信息:哪些菌偏多?哪些有益菌不足?可能关联哪些口腔风险?又有哪些日常因素值得优先调整?对反复龋齿、牙龈出血、顽固口臭、牙周问题反复的人来说,它有助于从“反复处理症状”走向“寻找失衡原因”;对希望提前管理健康的人来说,它也提供了一张可供追踪的口腔微生态基线。
接下来,本文将从口腔菌群讲起,解释口腔菌群检测究竟能看见什么、检测有哪些意义与价值、哪些人更值得检测,以及怎样把检测结果转化为贴近日常生活、能够长期坚持的科学干预方案。
很多人想到口腔健康,首先想到的是“有没有蛀牙”?“牙齿白不白”?“口气重不重”?但从现代口腔医学和微生态学的角度看,口腔并不是一个只有牙齿和牙龈的空间,而是一个高度复杂、不断变化的“小型生态系统”。
作为人体与外界接触最频繁的入口之一,口腔拥有仅次于肠道的丰富微生物群落。我们每天吃饭、喝水、说话、睡眠、刷牙和吞咽,都会持续影响这一生态环境。
研究显示,成年人口腔内约有500亿至1000亿个细菌,目前已发现的口腔微生物超过700种,常见优势菌约200种;此外还包括真菌、病毒和古菌等。它们从出生后逐步定植,长期分布于牙面、牙缝、牙龈沟、舌背、口腔黏膜和唾液中。
成人口腔内不同生态位及其优势细菌类群
DOI: 10.1007/978-3-031-79146-8_2
健康口腔并非无菌最好,而是生态平衡
很多人从小接受的口腔卫生观念是“把细菌刷掉”,认为口腔中的细菌越少越好。事实上,这并不准确。健康口腔本来就需要一群相对稳定的常驻微生物。在谷禾检测报告中,这些细菌通常分为两大阵营:
☛第一阵营:口腔共生菌/潜在有益菌: 它们是口腔的”维和部队”。比如血链球菌(Streptococcus sanguinis)能产生过氧化氢,抑制致龋的变异链球菌;罗伊氏乳杆菌(Lactobacillus reuteri)能分泌罗伊氏菌素,抑制牙龈卟啉单胞菌;黏液罗斯氏菌(Rothia mucilaginosa)定植在舌背和软腭,很少致病;奈瑟菌属能把膳食中的硝酸盐还原为亚硝酸盐,后者在体内转化为一氧化氮(NO),帮助血管舒张、调节血压。这些菌越多、越占优势,口腔越健康。
☛第二阵营:口腔病原菌: 它们是”捣乱分子”,一旦失控就会引发疾病。致龋菌如变异链球菌(Streptococcus mutans)能把糖发酵成乳酸,把牙菌斑 pH 降到 5.5 以下,溶解牙釉质;牙周致病菌如牙龈卟啉单胞菌,能分泌叫 gingipains 的蛋白酶,降解补体、劫持免疫信号,让菌群逃脱宿主防御,并驱动牙槽骨吸收;产硫菌如Solobacterium moorei,分解含硫氨基酸产生硫化氢,是口臭的元凶。
健康口腔中,有益菌与致病菌保持动态平衡:前者占优势,后者维持在较低水平。一旦平衡被打破——比如高糖饮食、口腔清洁不到位、吸烟、压力、抗生素滥用——致病菌就会趁虚而入,有益菌萎缩,多样性下降,菌群进入“失调”状态。失调不是某一种菌多了那么简单,而是整个生态结构发生了质变。
龋齿、口臭和牙周炎,本质上都和菌群失调有关
生活中常见的蛀牙、牙龈出血、口臭和牙齿松动等,并不只是“没刷干净牙”这么简单。这些问题往往提示口腔微生态平衡已受到影响,与菌群失衡及其引发的局部炎症密切相关。
(1)龋齿(蛀牙): 当你频繁摄入糖分,变异链球菌等产酸菌获得充足”燃料”,持续产酸,牙菌斑 pH 长期低于 5.5,牙釉质脱矿速度超过再矿化,龋洞就形成了。
值得注意的是,致龋过程里”产酸”和”耐酸”是两回事——变异链球菌既产酸又耐酸,而韦荣氏菌虽不直接产酸,却消耗乳酸、维持低 pH 环境,为更耐酸的致病菌铺路。这就是为什么报告里韦荣氏菌偏高也会被标记为龋齿风险信号。
(2)牙周炎: 这是成年人失牙的首要原因。当龈下菌斑菌群失衡,牙龈卟啉单胞菌、福赛坦纳菌、齿垢密螺旋体(合称”红色复合体”)大量增殖,它们形成高度组织化的生物膜,持续激活 IL-1β、TNF-α、IL-6 等促炎因子,通过 RANKL/RANK 通路驱动破骨细胞活化,导致不可逆的牙槽骨吸收。牙龈出血、牙周袋加深、牙齿松动,都是这场”骨吸收战争”的不同阶段。
编辑
(3)口臭: 约 80–90%的口臭源自口腔本身。舌背和牙周袋里的厌氧菌分解含硫氨基酸(半胱氨酸、甲硫氨酸),产生硫化氢、甲硫醇、二甲基硫等挥发性硫化物(VSC),就是那股臭鸡蛋味。
编辑
Solobacterium moorei、Atopobium parvulum、产黑色素普雷沃氏菌是主要”产臭工厂”。所以持续性口臭不一定是”肠胃不好”,而可能是舌背和牙周袋菌群失调的信号。
(4)黏膜与根管感染:粪肠球菌(Enterococcus faecalis)以极强耐药性著称,是根管治疗失败、持续性根尖周炎的主要元凶;衣氏放线菌可引起面颈部慢性化脓和瘘管。这些菌的存在,提示口腔某些”死角”已经形成慢性感染灶。
口腔不是孤岛:口腔菌群影响全身?
如果说上面四类还停留在“口腔内部”,那么近二十年最令人震惊的发现是:口腔菌群失衡,会通过多条通路波及全身。
连接口腔菌群失调与全身疾病的主要机制通路
编辑
doi: 10.1080/20002297.2026.2635233.
• 口腔-血液通路:牙龈沟和牙周组织血管丰富。咀嚼、刷牙、使用牙线等日常活动可造成微小损伤,使口腔细菌短暂进入血液;在牙周炎时,牙周袋上皮溃疡形成持续“入口”,更多细菌及其毒力因子可进入循环。
注:在动脉粥样硬化斑块中,已检测到牙龈卟啉单胞菌、变异链球菌、具核梭杆菌等 23 种口腔细菌的 DNA 甚至活菌。它们直接定植血管壁,激活内皮炎症,促进泡沫细胞形成。
编辑
• 系统性炎症通路:口腔菌群失调可诱发持续牙周炎症。局部产生的TNF-α、IL-1β、IL-6等促炎因子可进入血液,并刺激肝脏产生C反应蛋白等炎症指标,推动全身低度慢性炎症,进而影响血管内皮、糖代谢和免疫稳态。
• 免疫失调与分子模拟通路:某些牙周相关菌可改变宿主蛋白,产生免疫系统可能误识别的“新抗原”。例如,蛋白瓜氨酸化可能诱导抗瓜氨酸化蛋白抗体形成,在遗传易感者中与自身免疫反应有关。口腔炎症还可能对免疫细胞进行持续“预激”,使其在其他组织中产生过强的炎症反应。
• 微生物代谢物通路:口腔菌代谢产生的小分子及其前体可被吸收进入血液,影响远端器官的代谢和血管功能。例如,口腔菌可将膳食硝酸盐还原为亚硝酸盐,后者进入血液后参与一氧化氮生成,有助于血管舒张;但在菌群失调背景下,某些代谢产物也可能参与代谢紊乱和炎症过程。
关键口腔病因及其系统性影响
编辑
doi: 10.1080/20002297.2026.2635233.
• 口腔-胃肠道通路:口腔是幽门螺杆菌的重要储存库,牙菌斑中可检出存活的 Hp,随吞咽下行定植胃黏膜。口腔的梭杆菌、普氏菌、韦荣氏菌也可进入胃部,在 Hp 感染导致胃酸减少的条件下定植,产生亚硝胺,加速萎缩性胃炎→肠上皮化生→胃癌的级联反应。
• 口腔-呼吸道通路:健康人每天微量误吸约 0.01–0.1 毫升口腔分泌物,正常情况下被肺部清除。但当口腔菌群失调、吞咽功能下降(老年人、脑卒中后),口腔里的肺炎链球菌、金黄色葡萄球菌、铜绿假单胞菌及厌氧菌就会定植下呼吸道,引发吸入性肺炎。研究显示,口腔卫生干预可使 ICU 机械通气患者呼吸机相关性肺炎发生率降低约 40%。
• 口腔-脑通路:牙龈卟啉单胞菌可经三叉神经轴突顺行传输或突破血脑屏障进入脑组织,在阿尔茨海默病患者脑中检出其 DNA 及毒力蛋白酶 gingipains;变异链球菌的特定亚型(含胶原结合蛋白)可定植脑血管,诱发微出血,与脑出血独立相关。
所以,关注口腔菌群,是为了更早发现失衡的方向,更有针对性地保护牙齿、牙龈和全身健康。
传统口腔检查的”盲区”
大多数人理解的”口腔检查”,可能是每年洗牙时医生拿探针敲一敲、看一看:有没有龋洞、牙龈红不红、牙结石多不多。这套方法沿用百年,确实有效,但它有一个根本局限——它只能看到”结果”,看不到”原因”。
传统检查对 “无症状期” 几乎无能为力
龋洞是菌斑产酸脱矿之后的产物,牙周袋是骨吸收之后的产物,口臭是产硫菌已经大量增殖之后的产物。当这些”结果”被肉眼或 X 光捕捉到时,菌群层面的失衡往往已经持续了数月甚至数年。传统检查回答的是”现在坏到什么程度“,而菌群检测回答的是”为什么会坏、正在往哪个方向坏“。
更深一层,传统检查对“无症状期”几乎无能为力。但一个牙齿不松、刷牙偶尔出血的人,大概率不会主动去做全面的口腔检查。口腔菌群检测的意义,正是把这个”沉默的窗口期”彰显出来。
到底在测什么:从”培养”到”测序”的跨越
早期的口腔微生物研究靠”培养法”——把样本涂在培养皿上,看长出什么菌。但口腔里超过 50% 的细菌是“不可培养”的,培养法只能看到冰山一角。
今天的菌群检测,普遍采用高通量测序技术,针对细菌核糖体小亚基 RNA 基因的可变区(如 V3–V4 区)进行扩增测序,能鉴定到“属”或”种”级别,回答“有哪些菌、各占多少”。
口腔菌群检测能回答的四个核心问题
一份合格的口腔菌群检测报告,至少能回答四个问题,这四个问题恰好对应了健康管理的四个环节:
①—我现在的口腔菌群处于什么状态?
报告会给出一个整体结论——是”稳态良好””稳态一般”还是”紊乱”。这个总判断,比单看某一项指标更重要,因为它反映的是生态结构。
②—哪些菌超标了、哪些菌偏少了?
报告会逐一列出超标致病菌及其倍数,以及偏少的有益菌。这是”敌情通报”——知道敌人是谁、在哪、有多强,才能精准打击。
③—这些失衡意味着什么疾病风险?
报告会基于菌群-疾病的循证关联,给出多个维度的风险评分,并标注证据等级(A/B/C)。这一步是把”菌”翻译成”病”——让非专业人士也能看懂”这堆细菌名字”背后的健康含义。每一个分数背后,都对应着具体的菌群-疾病机制和文献证据。
④—我该怎么办?
报告会给出针对性的干预建议,从口腔护理、饮食调理到全身健康管理。这是检测的落脚点——检测不是目的,干预才是。
证据等级:理性看待风险评分
这是最容易被忽视、却最该被重视的一点。报告里每一项风险评分都标注了证据等级,依据的是牛津循证医学中心(OCEBM 2011)分级标准:
• A 级:有系统评价或多项随机对照试验(RCT)支持,证据最充分。比如牙周炎与龋齿的菌群关联,大量 RCT 和 Meta 分析已证实,属于 A 级。
• B 级:有队列研究或病例对照研究支持,证据较强但尚需更多验证。比如牙周炎与动脉粥样硬化的关联,多数为 B 级。
• C 级:仅有机制研究、动物实验或小样本观察,处于探索阶段。比如某些菌群-神经认知的关联,目前多为 C 级。
编辑
理解这个分级,才能避免两种极端:一是把所有高分都当”判决书”,陷入焦虑——比如评分 99 分,看起来吓人,但如果证据等级是 C 级,它更多是一个”值得关注的探索性信号“,而非”你一定会得抑郁症”;二是把所有低分都当”没事”,忽视早期预警。正确的态度是:A 级高分优先处理,B 级高分值得关注,C 级高分作为生活方式调整的参考。
检测的定位:风险评估,而非疾病诊断
必须反复强调:口腔菌群检测是”风险评估与健康管理”工具,不是”疾病诊断”工具。它不能替代牙科临床检查(探针、X 光)、不能替代医学检验(血糖、血脂、幽门螺杆菌呼气试验)、更不能替代病理诊断。它的价值在于”前置”和”补充”——在症状出现之前提示风险方向,在临床检查之外补充菌群维度的信息。
打个比方:菌群检测像体检里的”血脂化验”,它告诉你风险偏高,但到底有没有冠心病,还得靠心电图、冠脉造影等临床检查。同样,菌群检测告诉你牙周炎风险 80 分,但到底有没有牙周袋、骨吸收多少,还得靠牙科的探诊和全口 X 光。两者结合,才是完整的健康判断。
从统一建议到“因菌施策”
传统的口腔健康建议,几乎是”千人一面”的:早晚刷牙、用含氟牙膏、少吃糖、定期洗牙等。这些建议没错,但太笼统。
✔传统建议太过笼统,根据检测报告更有针对性
同样是”口臭”,有人是舌背产硫菌过多,有人是牙周袋厌氧菌失控,有人是扁桃体结石——原因不同,干预方向完全不同。
对舌背产硫菌,重点在清洁舌苔、使用舌刮;对牙周袋厌氧菌,重点在龈下刮治、局部抗菌;对扁桃体结石,则要耳鼻喉科处理。不分原因地猛刷牙、猛漱口,可能南辕北辙。
菌群检测的价值,在于把”千人一面”变成”因菌施策”。帮助口腔医生和受检者理解:风险更可能来自哪里,下一步应该优先做什么。
帮助发现“没有疼痛,但已经存在问题”
许多口腔疾病的发展是”沉默”的。牙周炎从牙龈炎到骨吸收,可能持续数年而无明显疼痛;龋齿从脱矿到成洞,早期也无感觉;口腔-全身的慢性炎症通路,更是悄无声息。等到症状明显,往往已经错过最佳干预时机。
发现”沉默的失衡”,抢占干预窗口
菌群检测最大的价值之一,是把这个“沉默窗口期”显影。例如一份报告显示牙周炎风险 80 分(高)、18 种病原菌超标、有益菌大面积偏少。如果没有这次检测,他大概率会继续”牙不疼就不看医生”,直到某天牙齿松动或牙龈反复流脓,才发现牙槽骨已经吸收。
而此时,骨吸收是不可逆的——再好的治疗也只能”止损”,无法”复原”。检测让他提前数年看到风险,从而有机会在不可逆损伤发生之前介入。
连接口腔与全身:从”看牙”到”管全身”
传统观念里,”看牙”和”看内科”是两回事。但菌群检测把两者连了起来。除了牙周炎、龋齿、口臭这些口腔问题,还有糖尿病、肥胖、高血压、动脉粥样硬化、阿兹海默病、慢阻肺、类风湿性关节炎、甚至肿瘤相关疾病——这些疾病风险并非凭空而来,而是基于口腔菌群与这些疾病已被验证的关联机制。
编辑
doi: 10.1080/20002297.2026.2635233.
①糖尿病:目前较有共识的双向关系
糖尿病会增加牙周炎风险,而重度牙周炎也可能增加血糖控制难度。
已有研究提示,规范牙周治疗后,部分糖尿病患者在数月后糖化血红蛋白可出现一定幅度下降。这个效果不能取代降糖药、饮食控制和运动,但说明牙周治疗应被看作糖尿病综合管理的一部分。
2型糖尿病与牙周炎之间的关系
编辑
doi: 10.1080/20002297.2026.2635233.
②心血管健康:有关联,但不能以菌群报告诊断
口腔菌群与动脉粥样硬化、冠心病、脑卒中等存在较多流行病学关联。口腔病原菌DNA或相关成分在部分动脉斑块中被检出,也提示可能存在炎症和微生物相关机制。
注:菌群检测只能提供附加线索,不能替代心电图、血脂、血压监测、冠脉评估等标准检查。
心血管疾病(CVDs)中口腔-肠道轴的机制
编辑
doi: 10.3389/fcimb.2025.1658502
③肥胖、代谢健康等:关系复杂
肥胖、胰岛素抵抗、脂肪肝与口腔菌群变化、牙周炎之间存在双向影响的可能。高糖高脂饮食、慢性低度炎症、睡眠不足和口腔卫生差,可能同时推动代谢问题和口腔失衡。
慢性牙周炎与肥胖之间的双向联系机制
编辑
doi: 10.1016/j.jds.2025.07.009
④胃肠道疾病:关联密切
口腔菌群与胃炎、反流性食管炎、溃疡性结肠炎、克罗恩病存在双向关联。口源微生物可能影响肠道菌群、肠屏障和免疫平衡。
牙周炎与炎症性肠病之间的微生物相关性
编辑
doi: 10.3389/fcimb.2023.1132420
⑤呼吸道健康:对老年、吞咽障碍尤其重要
口腔是上呼吸道和下呼吸道微生物的重要来源之一。对吞咽功能差、长期卧床、气管插管、免疫低下者,口腔病原菌可能通过微误吸进入下呼吸道。
⑥自体免疫疾病
牙周相关菌可通过异常瓜氨酸化、抗瓜氨酸化蛋白抗体形成及免疫失衡,参与自身免疫反应。与系统性红斑狼疮、类风湿性关节炎等存在一定关联。
类风湿性关节炎发病机制中的口腔-肠道-免疫-营养轴
编辑
doi: 10.3390/ijms27052385
⑦神经系统疾病
与阿尔茨海默病、帕金森病和认知下降相关,可能通过全身炎症、血脑屏障受损及神经免疫激活影响大脑。
口脑轴及在阿尔茨海默病中的作用
编辑
doi: 10.1080/20002297.2026.2635233.
抑郁、焦虑、自闭症谱系障碍和精神分裂症可观察到口腔菌群差异,但目前多为相关性证据,易受饮食、用药、吸烟和口腔卫生等因素影响。
口腔微生物群影响神经精神疾病的可能机制
编辑
doi.org/10.1016/j.bbr.2024.115111
⑧多种肿瘤
口腔菌群与口腔癌、食管癌、胃癌、结直肠癌、肺癌、胰腺癌等存在关联,可能涉及慢性炎症、免疫逃逸、致癌代谢物及病原体迁移。
具核梭杆菌促进结直肠癌进展的机制
编辑
doi: 10.1080/20002297.2026.2635233.
正因如此,受检者虽然只是做了一次口腔菌群检测,报告却同时给出了口腔消化疾病、心血管疾病、神经系统疾病、代谢疾病、呼呼吸系统疾病、⾃体免疫疾病、肿瘤相关疾病等多个维度的风险评估。这并非”夸大其词”,而是基于口腔菌群与全身疾病已被反复验证的关联机制。
为干预效果提供”可量化”的追踪
健康管理的难点之一,是“不知道干预有没有用”。你开始认真刷牙、用牙线、调整饮食,三个月后口臭轻了些——但这是菌群真的改善了,还是只是暂时的?你做了龈下刮治,牙龈不出血了——但致病菌是不是真的减少了?没有检测,这些问题只能靠感觉回答。
用数据变化说明问题
菌群检测提供了“可量化”的追踪手段。干预前测一次,建立基线;干预 3–6 个月后复测,对比超标病原菌的倍数变化、有益菌的恢复情况、风险评分的升降。
这些数字是未来评估“干预是否有效”的标尺。如果复测时这些数字明显下降,说明干预方向正确;如果不降反升,则需要调整策略。这种”用数据说话”的闭环,是传统”凭感觉”无法实现的。
提升健康意识与依从性
最后一个常被低估的价值:检测本身能显著提升一个人的健康意识和行为依从性。心理学里有个”健康信念模型”——人们是否采取健康行为,很大程度上取决于他们是否”感知到风险”并”相信行动有效”。
很多人在看到自己的菌群报告后,会第一次认真学怎么用牙线、第一次主动减少含糖饮料、第一次预约牙周专科。这种“被数据触动”的行为改变,是检测最朴素也最实在的价值。
口腔菌群检测并非”人人都必须做”,对于没有口腔症状、口腔检查正常、定期洁牙、生活方式稳定的人,常规口腔检查和预防护理已非常重要,菌群检测可以作为可选项目。以下几类人群,做检测通常更有现实意义。
口腔疾病反复发作或久治不愈者
如果你属于以下情况,检测有助于帮你找到“治标不治本”的根源:
编辑
• 反复龋齿:补了又蛀、蛀了又补,尤其根面龋、邻面龋频发。检测可明确是否存在变异链球菌、龋齿放线菌等致龋菌的持续高负荷,以及是否有韦荣氏球菌等”耐酸帮凶”。
• 牙周炎反复发作:洁治后不久又出血、牙周袋反复加深。检测可评估龈下致病菌(牙龈卟啉单胞菌、齿垢密螺旋体、福赛坦纳菌等)是否未被清除,是否存在耐药生物膜。
• 顽固性口臭:各种漱口水、口香糖都试过,口臭依旧。检测可定位是舌背产硫菌(莫氏细小杆菌、极小陌生菌)还是牙周袋厌氧菌(产黑色素普雷沃氏菌)主导,从而精准干预。
• 根管治疗反复失败:检测可排查粪肠球菌等顽固耐药菌的定植。
患有全身慢病、希望协同管理者
口腔菌群与全身慢病的关联已被反复验证,以下人群尤其值得检测:
编辑
• 心血管疾病患者或高危人群:牙周致病菌入血定植血管壁、驱动内皮炎症是动脉粥样硬化的促发因素之一。提示口腔菌群可能是心血管风险的一个”隐形推手”。
• 糖尿病患者:牙周炎与糖尿病是“双向恶化”关系——糖尿病增加牙周感染风险,牙周炎加重胰岛素抵抗。研究显示,有效治疗牙周炎可使糖尿病患者的糖化血红蛋白(HbA1c)下降约 0.4%。
• 代谢综合征/肥胖人群:口腔菌群参与能量摄取和炎症调节,产黑色素普雷沃氏菌等与肥胖相关。
• 幽门螺杆菌感染者、胃癌高危人群:口腔是幽门螺杆菌(Hp)的储存库,口腔菌群失调还可能促进亚硝胺生成。
• 阿尔茨海默病高危/认知下降人群:牙龈卟啉单胞菌及其毒力因子已在AD 患者脑组织中被检出。
但必须明确:牙周治疗不能替代全身慢病治疗,口腔菌群检测也不能用于诊断全身慢病。
备孕、孕期及围绝经期女性
青春期、妊娠期和更年期的激素波动,都可能影响牙龈血流、局部免疫和菌群生态。牙周炎是早产低体重儿的独立危险因素(风险约升高 2–3 倍),备孕期做一次菌群检测、提前处理牙周风险,比孕期发现再处理要安全得多——孕期尤其是孕早期,许多牙科治疗受限。
编辑
备孕前建议完成:
孕期出现牙龈出血和肿胀很常见,但不应忽略。涉及药物、强效漱口水或益生菌补充时,应由口腔医生与产科医生共同评估。
种植、正畸、复杂修复前后的人群
种植体、冠桥、贴面、活动义齿、隐形矫治器和固定托槽都可能带来新的清洁死角。
对于牙周炎史、龋病高风险、吸烟者、糖尿病患者或口腔清洁困难者,菌群检测可辅助制定更严格的维护方案,但仍需以临床检查和定期维护为主。
儿童和青少年
儿童口腔菌群处于动态建立阶段,受母婴传播、家庭环境、饮食、牙齿萌出、抗生素暴露、口腔卫生习惯等影响。
编辑
适合关注的情况包括:
儿童检测结果必须结合年龄、乳牙或恒牙状态、饮食和家庭护理情况理解,不能照搬成人参考范围,更不能因为“菌群异常”而随意使用抗生素或强消毒产品。
老年人及吞咽功能下降者
老年人常见口干、根面龋、牙周病、义齿清洁不良、吞咽能力下降和多重用药。对卧床、脑卒中后、认知障碍、帕金森病或吞咽障碍人群,口腔卫生还与误吸性肺炎风险相关。
检测可评估口腔是否存在肺炎链球菌、金黄色葡萄球菌、铜绿假单胞菌及厌氧菌的高负荷,并通过强化口腔护理降低误吸风险。
这类人群重点不是追求复杂菌群“优化”,而是:
长期不良生活习惯者
除此之外,以下人群也值得检测:
编辑
拿到报告后,“怎么办”才是关键。本章把干预手段按“基础且证据更扎实”到“辅助或新兴方法”排列,逐一讲解如何”结合菌群”来干预。对绝大多数人来说,最有效的不是昂贵的产品,而是规范清洁、专业治疗和长期生活方式改变。
口腔卫生:把”机械清洁”做到位
✔巴氏刷牙法:每天两次,每次不少于 2 分钟。 关键不是”刷得用力”,而是“刷得到位”——刷毛与牙面成 45°,指向牙龈方向,小幅度(2–3 颗牙)水平颤动,然后向冠方拂刷。这个角度能让刷毛进入龈沟 1 毫米左右,清除那里的菌斑。
✔牙线或牙间隙刷:牙刷只能清洁牙面的 60%,剩下的 40% 在牙缝里,只能靠牙线或间隙刷。邻面是龋齿和牙周炎的高发区。
✔舌苔清洁:这是最被忽视的一步,用舌刮或牙刷轻刷舌背,从舌根向舌尖方向刮 3–5 次,能显著减少产硫菌负荷和挥发性硫化物。研究表明,舌刮可使口臭相关 VSC 降低约 50–70%。
✔冲牙器是辅助:冲牙器对清除食物残渣、冲洗矫治器周围和改善部分牙龈炎有帮助,但对紧密邻接面成熟菌斑的机械刮除能力通常不如牙线或牙间隙刷。
✔含氟牙膏:氟化物通过促进牙釉质再矿化、抑制致龋菌代谢,是预防龋齿最有效、证据最充分的手段(A 级证据)。
注:成人建议含氟浓度 1000–1500 ppm。
专业治疗:先除病灶,再谈生态恢复
菌群检测提示风险,但真正的”清除”往往需要专业手段。
✔定期洁治(洗牙):牙结石是钙化的菌斑,表面粗糙、持续吸附细菌,靠刷牙无法清除。超声波洁治能去除龈上牙石和色素,是控制菌斑的基础。
✔龈下刮治与根面平整:针对牙周袋,当深度超过 4 毫米,龈下菌斑和牙结石已无法用普通洁治清除,需要局麻下用刮治器深入牙周袋,平整根面、清除生物膜。这是牙周炎治疗的”金标准”,对降低龈下致病菌(牙龈卟啉单胞菌、齿垢密螺旋体等)负荷至关重要。
✔龋齿及时修复:一旦发现龋洞,尽早充填,防止病变深入牙髓。
✔根管感染的处理:粪肠球菌等耐药菌导致的根管持续感染,可能需要根管再治疗或显微根尖手术,配合根管内封药。
✔必要时的抗菌辅助:对于特定致病菌高负荷、机械治疗效果不佳的情况,牙医可能建议局部或全身抗菌药物(如米诺环素凝胶、甲硝唑等),但必须在专业指导下使用,避免滥用加剧菌群失调。
菌群调节:使用特定口腔益生菌
益生菌治疗的目标是用非致病微生物替代有害的本地微生物。益生菌常被用于治疗各种口腔和牙科疾病,如牙周病、口臭、龋齿和口腔念珠菌病等。
益生菌如唾液链球菌(Streptococcus salivarius M18、Streptococcus salivarius K12)、植物乳杆菌(Lactobacillus plantarum)、乳双歧杆菌(Bifidobacterium lactis)、罗伊氏乳杆菌(Lactobacillus reuteri)和唾液乳杆菌(Lactobacillus salivarius),已经证明了它们在支持口腔健康方面的功效。
• 唾液乳杆菌(Lactobacillus salivarius):可以产生强大的抗菌蛋白,称为细菌素,这可能对各种细菌的生长有害。此外,实验室研究表明,唾液乳杆菌直接与牙龈上皮细胞结合,表现出抗炎特性并促进和谐的免疫反应。L. salivarius (WB21 和 TI 2711)可能通过包括对变异链球菌的凝聚和生长抑制等机制减少龋齿,同时降低牙菌斑的产酸性。
• 罗伊氏乳杆菌(Lactobacillus reuteri):分泌罗伊氏菌素,抑制牙龈卟啉单胞菌、具核梭杆菌等牙周致病菌,多项 RCT 显示可减轻牙龈炎出血指数。L. reuteri (DSM 17938 和 ATCC PTA 5289)已被证明能显著减少口臭。
• 乳双歧杆菌(Bifidobacterium lactis):B.lactis HN019在临床牙周指标方面显著改善,牙周病原体减少更有效率,牙龈软骨液中的促炎细胞因子水平下降。
•植物乳杆菌(Lactobacillus plantarum):L.plantarum在抑制变异链球菌和白色念珠菌的生长、破坏致病性生物膜的形成,以及影响关键代谢通路、真菌耐受性和氧化应激相关基因表达方面表现出显著效果。
• 副干酪乳杆菌(Lactobacillus paracasei):可抑制变异链球菌,辅助降低龋齿风险。
•唾液链球菌 K12 / M18(Streptococcus salivarius):定植舌背,产生细菌素,抑制产硫菌和致病菌,对口臭和反复咽炎有循证支持。
还有研究认为,L. reuteri RC-14, L. rhamnosus GR-1和L. reuteri ATCC PTA 5289可能通过与酵母共聚,阻碍白色念珠菌的发育,从而避免其他病原体进入口腔表面。
注意
个性化口腔护理方法
除了益生菌,全面的口腔护理方案还能支持牙齿和牙龈的自然愈合,与人体口腔化学反应相协调,促进口腔健康。
✔木糖醇相关产品有助于减少变异链球菌
木糖醇是帮助调节口腔酸性的重要成分,定期使用木糖醇薄荷和口香糖与变异链球菌(S. mutans)数量减少相关,可能降低牙菌斑的附着性。
这些产品包括木糖醇、天然薄荷香、硬脂酸镁和天然薄荷。
木糖醇一旦被变异链球菌吸收,会显著干扰该细菌的正常能量生成途径,从根本上改变其生长和生存机制。与其他糖类不同,木糖醇无法被变异链球菌加工为能量,这会扰乱细菌正常的新陈代谢过程。这种破坏导致细菌细胞内木糖醇转化为木糖醇-5-磷酸,形成液泡并损伤细胞膜。这些变化阻碍了细菌的生长和存活能力。
此外,变异链球菌试图将脱磷酸化的木糖醇-5-磷酸排出细胞,但木糖醇代谢无能量,实际上使细菌饥饿,阻碍其生长,最终导致其死亡。同时,木糖醇还能刺激唾液分泌,有助于中和酸性环境。
✔针对特定口腔病原体的抗菌药物
甲硝唑:一种外用药物,对口腔内的专性厌氧微生物有效,包括来自感染坏死性牙髓的微生物。在体外实验中,甲硝唑抑制了超过99%的蛀牙病变和感染牙根质中的细菌。
青霉素:已被证明对多种革兰氏阳性链球菌和葡萄球菌菌株,以及某些革兰氏阴性菌有效。
氯己定:氯己定破坏唾液中酸性糖蛋白基团,可减少斑块粘附。它还通过粘附细胞外多糖或与钙离子竞争菌斑中的粘附,防止细菌粘附牙齿表面。
✔氯二氧化物(ClO2)有助于改善口臭和除菌
氯二氧化物(ClO2)作为目标化合物,通过顺序机制作用于挥发性硫化合物(VSCs),这些硫化合物是口腔臭味的主要来源。
最初,ClO2与硫醇化合物如L-半氨酸反应,生成ClO2−和硫醇自由基(RS.),随后将硫醇化合物转化为二硫键,如半胱氨酸。硫醇化合物的还原过程通过生成二硫化物进行,从而解决异味硫醇。同时,ClO2通过渗透细菌细胞并破坏细胞质氨基酸和膜蛋白,导致微生物细胞死亡,展现出杀菌特性。
✔不同种类的抗菌肽
抗菌肽广泛存在于人体内,具有抗微生物活性,被认为是清除口腔病原体的潜在有效分子。
口腔中最常见的抗菌肽包括α-和β-防御素(以hNP表示)、组胺、statherin、肾上腺髓质素、天青杀素和cathelicidins(LL37)。
一项研究显示,LL37/hCAP18衍生的合成肽对血链球菌具有增强的杀菌活性。此外,在与人类 b-defensins 比较时,发现 LL37 对包括 S.mutans、S. sanguinis、S. salivarius和 S. mitis在内的一组口腔细菌具有更高的活性。
Statherin(富酪蛋白)存在于唾液和龈盂液中,能抑制口腔内厌氧菌的生长。
Azurocidin是一种存在于唾液中的蛋白质,通过强结合脂多糖对革兰氏阴性菌表现出强效的抗菌活性。
✔精油也可以有效针对口腔病原体
精油(EOs)具有抗菌、抗真菌和抗炎作用,可通过破坏细胞膜通透性、诱导细胞成分泄漏,以及促进活性氧生成来干扰蛋白质合成和细胞分裂,最终导致微生物死亡。
在多种口腔病原体中,变异链球菌(S. mutans)对精油最敏感,其次为S. sobrinus、唾液链球菌(S. salivarius)、血链球菌(S. sanguis)和嗜酸乳杆菌(L. acidophilus)。
有限研究显示,牛至油可抑制白色念珠菌生物膜附着和形成。精油漱口水也可能减少牙菌斑、牙龈炎和牙周炎,可作为氯己定的辅助或替代选择。甜橙、苦橙、柠檬、酸橙、葡萄柚、佛手柑、柚子和金桔等柑橘类精油用于漱口水时亦显示出潜在药用价值。
谷禾口腔菌群检测报告会结合个人检测结果,提供针对性的个性化干预建议。
编辑
口腔微生物移植
口腔疾病的替代治疗之一是口腔微生物群移植(OMT),这是一种通过改变微生物群失调以恢复微生物生态平衡的治疗方式。
OMT旨在将健康供体的口腔生物移植至龋病或牙周炎患者。其流程包括:从无龋供体(可为患者家属)采集牙菌斑,以生理盐水保存,再用尼龙拭子涂布于龋活跃患者牙面。
注:理想供体应具有稳定、健康的口腔微生态,无致龋菌,尤其无变异链球菌,且糖刺激后口腔pH下降较小。
✔OMT可调节免疫与竞争病原菌
物种间相互作用和免疫调节可能是OMT发挥作用的重要机制。研究提示,OMT可降低IL-1、IL-6、TNF-α和TGF-β水平,从而减轻相关的炎症。
OMT可能通过在口腔定植、竞争病原菌的黏附位点和营养物质、产生细菌素及过氧化氢,并调节局部和全身免疫反应发挥作用。但移植生物膜需能适应受体口腔环境,并长期维持有益效应。
OMT的安全性要求与口服益生菌相似:供体生物膜应无病原风险且遗传稳定。然而,其具体机制和最佳实施方式仍不明确,例如应直接移植健康供体生物膜,还是预处理以减少潜在致病菌;体外培养生物膜与天然共生生物膜何者更优,也尚待研究。现有证据表明,具有促健康特性的临床菌株生物膜可能有助于干扰或替代疾病相关生物膜。
饮食调理:喂”好菌”、饿”坏菌”
饮食是塑造口腔菌群最强大的日常力量之一。
✔控糖,尤其是减少游离糖的摄入频率:致龋菌的”燃料”是糖,而且关键是“频率”而非”总量”——一天喝一杯含糖饮料,比一次性吃很多糖更伤牙,因为每次摄糖后菌斑 pH 会低于 5.5 持续 20–30 分钟。建议减少含糖饮料、甜食、零食,摄糖后及时漱口。
✔增加膳食纤维: 蔬菜、全谷物等富含纤维的食物需要充分咀嚼,能刺激唾液分泌、机械清洁牙面,同时纤维发酵产物有利于有益菌。唾液本身含缓冲物质(碳酸氢盐)和抗菌蛋白(sIgA、乳铁蛋白、溶菌酶),是天然的”护牙液”。
编辑
✔适量摄入发酵食品:无糖酸奶、纳豆、泡菜等发酵食品含活菌,对口腔和肠道菌群都有正向调节作用。罗伊氏乳杆菌偏少,适量摄入发酵乳制品是天然的补充途径。
✔硝酸盐丰富的蔬菜:菠菜、芹菜、甜菜根等富含硝酸盐,口腔里的奈瑟菌、韦荣氏菌能将其还原为亚硝酸盐来抑制致病菌并有益于心血管健康。
硝酸盐在口腔和全身健康中的作用示意图
编辑
Washio and Takahashi, 2025
✔避免长期饮酒和过烫饮食:酒精改变口腔 pH、抑制唾液分泌、促进念珠菌增殖;过烫饮食损伤黏膜屏障,为细菌入血创造条件。
✔多酚和类黄酮:最近的证据表明,食物来源的天然产品,尤其是多酚和类黄酮,作为P. gingivalis毒力因子的强效抑制剂,专门针对牙龈蛋白酶(Rgp和KGP)以减弱细菌的致病性。这些化合物不仅抑制细菌生长和生物膜形成,还通过干扰膜结合的特异性转运酶破坏能量代谢。
✔姜黄素:作为一种多酚化合物,具有抗炎、抗氧化、抗菌特性。它通过调节关键的炎症通路(如NF-κB)和氧化应激反应,展现出对多种口腔疾病的治疗潜力,如牙周病、龋齿、复发性口腔炎等。
编辑
DOI:10.3389/FPHAR.2025.1661443
全身健康协同:口腔不是孤岛
✔戒烟:吸烟是牙周炎最重要的可控危险因素,会显著改变菌群结构、抑制免疫、减少牙龈血流。戒烟后,牙周治疗效果和菌群恢复都会明显改善。
✔控制血糖:糖尿病患者唾液葡萄糖升高,为致龋菌和念珠菌提供”养料”,同时微血管病变削弱牙周组织修复。控制血糖是糖尿病合并牙周炎的”双线作战”。
✔管理压力与睡眠:长期压力和睡眠不足会降低 sIgA 和唾液分泌、改变菌群组成。虽然证据等级需审慎看待,但压力管理对口腔和全身菌群都有益。
✔谨慎使用抗生素:避免无指征使用广谱抗生素,必要时配合益生菌,减少对口腔和肠道菌群的”误伤”。
注意:不同人群的“菌群干预重点”并不一样
编辑
定期复测:形成管理闭环
干预不是一次性的,需要”检测→干预→复测→调整”的闭环。建议干预 3–6 个月后复测一次,重点看:超标致病菌倍数是否下降、有益菌是否恢复、风险评分是否降低。如果数字改善,说明方向正确;如果未改善,则需调整干预策略或寻求进一步专科治疗。
口腔菌群检测的真正价值,不是制造新的焦虑,也不是让人执着于某一个菌名或一个百分比,而是帮助我们换一种视角理解口腔健康。过去,我们只问:有没有蛀牙?牙龈有没有出血?口气重不重?
未来,我们还应关注:
当然,检测不是给健康贴标签,更不是替代牙科检查的“万能答案”。其价值在于风险评估与健康管理,并应与牙周探诊、口腔影像、龋病检查及必要的全身检查相结合。重点不在于报告中有多少陌生菌名,而在于能否据此采取行动:科学刷牙和使用牙线,做好舌苔与牙缝清洁,减少频繁摄糖,及时接受专业牙周治疗,并将口腔健康纳入整体健康管理。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Guo ZL, Cui MW, Dong YL, Wang S. The oral microbiome as a regulatory hub for systemic health: a systematic review of mechanistic links and clinical implications. J Oral Microbiol. 2026 Mar 3;18(1):2635233.
Liu S, Wang S, Zhang N, Li P. The oral microbiome and oral and upper gastrointestinal diseases. J Oral Microbiol. 2024 Jun 3;16(1):2355823.
Rajasekaran JJ, Krishnamurthy HK, Bosco J, Jayaraman V, Krishna K, Wang T, Bei K. Oral Microbiome: A Review of Its Impact on Oral and Systemic Health. Microorganisms. 2024 Aug 29;12(9):1797.
Bostanghadiri N, Kouhzad M, Taki E, Elahi Z, Khoshbayan A, Navidifar T, Darban-Sarokhalil D. Oral microbiota and metabolites: key players in oral health and disorder, and microbiota-based therapies. Front Microbiol. 2024 Aug 20;15:1431785.
Baker JL, Mark Welch JL, Kauffman KM, McLean JS, He X. The oral microbiome: diversity, biogeography and human health. Nat Rev Microbiol. 2024 Feb;22(2):89-104.
Xiao J, Fiscella KA, Gill SR. Oral microbiome: possible harbinger for children’s health. Int J Oral Sci. 2020 Apr 30;12(1):12.
Chandra Nayak S, Latha PB, Kandanattu B, Pympallil U, Kumar A, Kumar Banga H. The Oral Microbiome and Systemic Health: Bridging the Gap Between Dentistry and Medicine. Cureus. 2025 Feb 12;17(2):e78918.
Belibasakis GN, Bostanci N, Marsh PD, Zaura E. Applications of the oral microbiome in personalized dentistry. Arch Oral Biol. 2019 Aug;104:7-12.
Krishnan K, Chen T, Paster BJ. A practical guide to the oral microbiome and its relation to health and disease. Oral Dis. 2017 Apr;23(3):276-286.
Burcham ZM, Garneau NL, Comstock SS, Tucker RM, Knight R, Metcalf JL; Genetics of Taste Lab Citizen Scientists. Patterns of Oral Microbiota Diversity in Adults and Children: A Crowdsourced Population Study. Sci Rep. 2020 Feb 7;10(1):2133.
Zaura E, Pappalardo VY, Buijs MJ, Volgenant CMC, Brandt BW. Optimizing the quality of clinical studies on oral microbiome: A practical guide for planning, performing, and reporting. Periodontol 2000. 2021 Feb;85(1):210-236.
谷禾健康
你有没有想过,亲吻一个人之后,你们交换的并不只是唾液、体温、情绪和暧昧,还有微生物。
微生物借着一次拥抱、一次深吻、一次共餐,在两个身体之间悄悄迁徙。它们不写情书,不发消息,不留下聊天记录,却可能比你更诚实地记得:你曾经和谁靠近过。
我们通常以为,身体是属于自己的。皮肤像一道边界,把我和世界分开。皮肤里面是我,皮肤外面是别人,是房间,是城市,是社会。
但微生物组研究正在告诉我们:这道边界可能没有想象中那么坚硬。
在我们的肠道、皮肤、口腔和呼吸道里,生活着庞大的微生物群。它们参与消化,调节免疫,影响营养吸收,也可能通过肠-脑轴影响情绪、压力反应和心理健康。更重要的是,这些微生物在某种意义上,“活”在我们的关系里、家庭里、城市里、制度里、时代里。
也就是说,身体并不是一个静止的内部世界,而是一场持续发生的交换。这种关于生命的理解,其实并不陌生。
《道德经》里讲:“万物负阴而抱阳,冲气以为和”,生命从来不是孤立的,而是在对立、流动、交换与平衡之中暂时成形。
现代科学正在从另一个角度靠近这个古老判断:食物、水、空气、家庭、伴侣、宠物、办公室、饮食、压力、城市环境、污染、孤独,甚至社会阶层,都可能参与塑造身体里的微生态。
本文借助微生物组这个窗口,重新理解身体与社会之间隐秘而深刻的连接:我们如何被关系塑造,如何被压力改变,如何被城市驯化,又如何把社会处境慢慢写进身体,在时代的洪流里,集体性的焦虑、速度、孤独与失衡,最终如何落实为一个人身体里的压力反应、免疫波动和微生态改变。
本文目录
01|家庭:血缘之外的继承
出生:身体不是一张白纸
家庭:一个微生物共同体
情绪:身体会记住家的温度
生活方式:餐桌、清洁与身体节律
宠物:家里的另一种微生物入口
02|亲密关系:身体记得谁靠近过
接吻:亲密是一场微生物迁徙
同居:菌株共享比血缘更有力量?
关系变化:结婚、分开与微生态重组
关系质量:安全感不抽象,它有身体回声
03|社交网络:微生物如何在人群中流动
接触:握手、拥抱与共享空间
社交位置不同,微生物暴露也不同
疫情改变的不只是病毒传播
04|孤独与压力
支持性互动 vs 压力性互动
社会支持:不只是安慰,也是一种生理缓冲
慢性压力:如何从关系进入肠道
从乳杆菌到犬尿氨酸:压力的代谢痕迹
肠道菌群反过来影响行为
05|城市:现代生活如何改变微生物暴露
城市是身体的外部生态
室内化生活,离土壤越来越远
绿地:城市里的微生物入口
06|健康选择,也需要现实条件的支持
不同生活条件,会进入菌群结构
健康建议,也要落到现实里
公共条件,也在塑造身体微生态
文化也会塑造身体边界
07|结语:健康不是控制身体,而是重建共生
从微生物组的角度看,一个人出生的那一刻,已经进入了一张看不见的交换网络。
母亲的身体、分娩方式、喂养方式、家庭成员的触摸、房间里的空气、餐桌上的食物,都会参与塑造一个婴儿最早的身体生态。
出生:身体不是一张白纸
我们最早继承的,除了基因、姓氏、长相、血缘,也包括一套看不见的微生物命运。
新生儿与母亲之间存在明显的肠道微生物相似性,这可能与分娩过程和母乳喂养中的微生物传递有关。顺产婴儿更容易获得类似母体阴道菌群的微生物,而剖宫产婴儿则更容易呈现类似皮肤来源的微生物特征;喂养方式同样会影响婴儿早期肠道微生物的建立。
3个月大时,剖宫产婴儿的双歧杆菌和拟杆菌(均为p < 0.05)较低,潜在病原体更多,且成分差异持续至12个月,可能增加疾病风险。
注:这个还是要根据每位妊娠期女性相应的身体状况自行选择,没有一种出生方式能够被简单地道德化,也没有一种喂养方式应该被贴上优劣标签。
这让我们看见一个更深的事实:所谓“我”,从一开始就与另一个身体、一个家庭发生着密切关系。
家庭:一个微生物共同体
共同生活的人,会共享空间、食物、空气、物品、作息、卫生习惯、身体接触。一个家庭有自己的餐桌,有自己的味道,有自己的清洁方式,有自己的睡眠节奏。久而久之,这些东西都会参与塑造家庭成员的身体生态。
我们常说,一个人身上有家里的影子。
过去,这句话多半是在说性格、口音、饮食偏好,或者处理亲密关系的方式。但现在,我们或许可以把它理解得更具体一点:一个人身上,也可能带着家庭的微生物痕迹。
兄弟姐妹之间也会表现出更高的微生物相似性,这可能与共同生活环境、相似的生活方式和遗传因素有关。也就是说,一个家庭内部可能逐渐形成某种独特的家族微生物谱系——不只是血缘上的家族,也是微生物意义上的家族。家庭成员,包括母亲之外的其他人,也可能把某些细菌传递给孩子,参与儿童微生物组的形成。
这也是我们在检测实践中发现,家庭成员之间的肠道微生态相似度比较高。
一个人从小吃惯的饭菜,家里是否经常开窗,父母是否爱干净到近乎焦虑,家中有没有宠物,家庭成员之间是亲密、松弛,还是长期充满争吵、沉默和压抑,这些都不只是记忆的一部分。它们可能通过饮食、压力、免疫、接触、日常行为,慢慢进入身体,成为一个人最早的生态底色。
情绪:身体会记住家的温度
家里的气氛,不只影响一个孩子的性格,也会影响他的身体节律。
长期被回应、被安抚、被稳定照料的孩子,身体更容易建立一种基本的安全感,更少的慢性压力,也更容易形成健康行为。而长期冲突、忽视和不可预测,则会让身体更早进入警觉状态。
这种警觉不止停留在性格里,它会通过应激系统进入身体,HPA 轴、皮质醇、免疫炎症反应,都可能改变肠道微环境,进而影响微生物组。
所以,家的温度不只停留在记忆里。
心理学常说,早年关系会塑造一个人的依恋模式;微生物组研究则让这个判断多了一层身体维度。家庭并不只是塑造一个人如何理解关系,也可能参与塑造他身体内部的生态环境。微生物组,或许正是身体保存早年情绪的隐秘方式之一。
生活方式:餐桌、清洁与身体节律
如果说家庭的情绪影响身体如何应对世界,那么日常生活方式,则更直接地塑造着微生物组。
其中最重要的入口,是餐桌。
餐桌不只是提供热量,也在给肠道微生物提供不同的生态条件。饮食偏好对肠道微生物组的形成尤其有影响。长期摄入营养结构更合理的食物,与更高的微生物α 多样性和代谢通路有关,也会改变某些与人体营养和健康相关的共生功能。
一个家庭长期吃高纤维、多样化、富含天然食材的食物,和长期依赖高糖、高脂、高盐、低纤维的加工食品,肠道里的微生物会面对不同的资源环境。它们的组成、功能和代谢方向,也会随之改变。
但家庭生活方式并不只包括餐桌。
家庭成员往往会共享相似的卫生习惯,并使用相同或类似的卫生产品。这些习惯可能影响皮肤微生物群,进而影响皮肤健康。
洗澡频率、沐浴露、洗发水、肥皂、洗衣液的选择、清洁剂的使用、衣物清洗方式、居住空间的通风与湿度,都可能改变皮肤表面的微生物环境。
运动也是重要变量。
运动可能增加肠道菌群多样性,并改善拟杆菌门/厚壁菌门比例。这一比例常被用于观察肠道菌群结构与体重、肥胖相关病理状态和胃肠健康之间的关系。运动还可能促进某些有益微生物的生长,增强黏膜免疫,并支持产生对胃肠道具有保护作用的代谢产物。
吸烟、饮酒、药物使用等成瘾性行为,也可能影响微生物组。
宠物:家里的另一种微生物入口
养宠物的家庭,往往会与宠物发生更多微生物共享。
尤其是在有婴幼儿的家庭中,宠物暴露可能增加某些与儿童肥胖和过敏性疾病呈负相关的细菌丰度;孕期和生命早期接触宠物,也与婴儿肠道微生物组的某些有益变化有关。
宠物暴露还具有双重效应
它可能增加微生物多样性,给家庭成员带来更丰富的微生物接触。
一只狗每天出门,接触草地、泥土、空气、其他动物和城市角落;它回到家里时,带回来的不只是气味和脚印,也包括一部分外部环境中的微生物。对一个越来越封闭、越来越清洁、越来越室内化的现代家庭来说,宠物有时像一个小型的自然入口。
另一方面,它也可能引入潜在病原体,增加某些健康风险。
有研究报告称,与宠物狗共同生活的女性,其样本中与尿路感染相关的致病性大肠杆菌的水平可能更高。
还有研究表明,母亲孕期接触狗,与男性后代 ADHD 风险之间存在正相关,这一现象仍需要进一步研究解释。
这正是微生物组研究有意思的地方:它很少给出简单的道德结论。
家庭从来不是一个封闭系统。人、动物、食物、空气、地板、沙发、床、户外环境,共同构成了一个流动的微生态网络。在这个网络里,宠物是一种特殊的参与者。它们把外面的世界带进家里,也把家庭成员暴露在一种更复杂的微生物交换之中。
家庭不是命运的全部,却是身体最早的生态现场。在这里,微生物被传递,菌群在共同生活中趋近;饮食、清洁、睡眠、运动、情绪被一遍遍重复,成为身体最初的秩序。一个人带着这些看不见的微生物印记,走向后来更复杂的亲密关系、城市生活与社会世界。
长大之后,我们会进入新的关系,和新的身体靠近,和新的生活空间重叠。从微生物组的角度看,它们也是身体的微生态事件。
接吻:亲密是一场微生物迁徙
亲密关系最直观的微生物入口,是身体接触。
拥抱、握手、亲吻、共餐、共用杯子、共享床铺和浴室,都会让两个身体之间发生微生物交换。深吻这样的亲密行为会带来明显的口腔微生物群趋同,而且接触时间越长,这种趋同可能越明显。
这并不意味着亲吻是危险的,更准确地说,亲密关系让身体的边界变得更开放。两个原本独立的微生态系统,因为接触、共处和重复生活,开始发生某种程度的重叠。
亲密关系不只是心理上的靠近,也是一种生物学意义上的靠近。
同居:菌株共享比血缘更有力量?
如果说接吻是瞬间的微生物迁徙,那么同居就是长期的微生态共处。
研究表明,同居夫妻或情侣,尤其是关系深厚的同居者,其微生物组比单身人士更为多样化。
同居对菌株共享的影响,可能比遗传或年龄更强。也就是说,两个没有血缘关系的人,只要长期生活在同一个空间里,也可能在微生物菌株层面变得更加相似。
编辑
883名同居者中,多数家庭内菌株共享率显著高于非同居者。家庭内共享率达11%–71%。
一个人做饭,另一个人吃;一个人养成夜宵习惯,另一个人也被带进去;一个人爱开窗,另一个人随之暴露在相同的室内外微生物环境中。久而久之,两个人的身体不只是适应彼此的脾气,也适应彼此的微生态。
关系变化:结婚、分开与微生态重组
亲密关系并不是静止的。结婚、同居、搬家、生育、分手、离婚,都会改变一个人的日常环境和微生物暴露。
编辑
婚姻或与伴侣同住可能因为共享生活空间和同步生活方式,增加微生物共享;
而一段关系的结束,则可能减少这种共享。
两个人分开之后,共同建立的一套生态会被拆散。一个人重新独居,重新安排饮食、睡眠和空间,也重新面对压力。
压力与微生物多样性下降有关;
抑郁与肠道微生物丰富度降低之间也存在相关。
关系破裂通常伴随独居、压力和抑郁情绪,因此可能进一步影响微生物组。
失去一个亲密的人,失去的不只是陪伴,也可能是共同餐桌、共同作息、共同空间和共同微生物暴露。身体需要重新适应一个人的生活,重新建立自己的节律。这就是为什么有些关系结束后,人会明显感到身体也变了。
微生物组提供了一个重要视角:关系变化会通过压力、饮食、睡眠和环境接触,进入身体内部。
关系质量:安全感不抽象,它有身体回声
一段支持性的关系,可能降低压力,帮助人维持更稳定的生活方式;一段长期冲突、冷漠、控制或不可预测的关系,则可能让身体长期处于应激状态。
编辑
社会连接可以增强肠道微生物多样性,并稳定其组成;动物研究还发现,社会连接与肠道微生物多样性之间可能存在双向调节关系。
某些特定细菌,例如 粪肠球菌(Enterococcus faecalis),可能通过抑制 HPA 轴过度激活,影响相关脑区神经活动,从而参与社会行为调节。
关系影响压力,压力改变肠道环境,肠道微生物又可能通过免疫、代谢和神经信号影响情绪和行为。
好的关系可能让身体更容易放松,让压力轴不过度紧绷,让饮食和睡眠更稳定,也让微生物组拥有更稳定的内部环境。
关系不是固定不变的。它始终是流动的、需要辨认和调整的。
这是一种对身体和生活秩序的保护。
和谁靠近、同住、共餐、接吻,会改变我们交换微生物的方式;一段关系是支持还是消耗,也会通过压力、睡眠、饮食和免疫反应,改变身体内部环境。
但亲密关系只是社会生活中最贴近身体的一层。再往外看,朋友、同事、邻居、办公室、学校和社区,同样构成了微生物交换的网络。
握手、拥抱、共餐、聊天,使用同一张会议桌,触碰同一个门把手,在同一间办公室里呼吸…
从微生物组角度看,这也是一张看不见的交换网络。人群传播的不只是信息、情绪和观念,也可能传播微生物。
接触:握手、拥抱与共享空间
社交网络影响微生物组,最直接的方式,是身体接触和空间共享。
拥抱、握手,都可以成为微生物传递的通道。除此之外,共用餐具、办公桌、设备、门把手、公共空间,也可能促进不同个体之间的微生物共享。尤其是办公室这样的室内环境,人和空间之间的微生物转移会受到多种因素影响。
一次握手,是礼貌,也是一种微生物接触;
一次拥抱,是安慰,也是一种皮肤微生态的短暂重叠;
…
编辑
在真实生活里,边界一直在被打开:通过皮肤,通过空气,通过物品表面,也通过我们反复进入的空间。
社交位置不同,微生物暴露也不同
社交网络的密度、布局和关系距离,都会影响微生物交换。
更密集的网络,往往意味着更频繁的人际接触,因此可能带来更显著的微生物共享。在某些中心化网络中,处在核心位置的人,也可能因为连接更多人、参与更多互动,而经历更多微生物交换。
在社会传播中,中心人物可能传播消息、观点、情绪和流行趋势。
而在微生物组中,他也可能是一个微生物交通枢纽。
编辑
老师、医生、服务员、销售人员、管理者,或者一个社交极其活跃的人,每天接触的人更多,进入的空间更多,触碰的物品更多。他们不仅处在人际网络的中心,也可能处在微生物交换的高流量位置。
初步研究显示,社交活跃、社会互动更多、社交焦虑较低的人,可能拥有更高的皮肤微生物群多样性。这可能与他们通过人际接触获得更多新的微生物种类有关。
这并不是说社交越多,菌群就一定越好。微生物交换具有双重性:它可能增加多样性,也可能增加潜在病原体暴露。
微生物组研究让我们看到,身体并不只是生活在个人习惯里,也生活在人群结构里。
你站在什么样的社交位置,和多少人接触,进入多少空间,拥有怎样的互动频率,都会改变身体与微生物世界相遇的方式。
疫情改变的不只是病毒传播
社交网络既然会影响微生物传播,那么改变社交网络,也会改变微生物暴露。
公共卫生干预可以通过改变社交网络动力学,影响病原体传播。比如在疫情期间,口罩、远程办公、线上聚会等措施,有效减少了病毒传播。
从更广的微生物组视角看,它也改变了人们的握手、拥抱、共餐、通勤、办公室互动、学校生活和公共空间使用。许多人从高频线下社交,转向屏幕中的低接触生活;从办公室里的共享空间,转向家庭内部的封闭环境。
这种改变有公共卫生意义,也有微生态意义。当这套系统被改变,微生物的流动路径也会随之改变。
当然,疫情期间减少病原体传播是必要的。而长期隔离、过度消毒和极端回避接触,也可能让人失去某些正常的微生物暴露和社会支持。
公共卫生困难的地方在于,在风险控制、社会连接和微生态多样性之间,寻找更合理的平衡。
社交网络让我们看见,微生物组并不只属于个人身体。我们在人群中交换语言,也交换菌群;传播情绪,也传播微生物;建立关系,也建立一张看不见的生态网络。
但社交网络的另一面,是孤独。接下来要看的,是微生物组与现代人最熟悉的一种处境:孤独与压力。
我们的通讯录里有很多名字,群聊里有很多消息,朋友圈里有很多动态,每天都在回复、协作、点赞、开会、闲聊… 似乎从未真正离开人群。
但很多人依然觉得缺少稳定的支持、可依赖的关系、真实的回应、身体放松的安全感。
从微生物组的角度看,孤独、压力、社会支持通过神经内分泌、免疫炎症、饮食行为、睡眠节律和肠-脑轴,改变肠道微生物赖以生存的环境。
支持性互动 vs 压力性互动
在讨论孤独之前,我们先来看两种关系。
有些关系让人放松,让人觉得世界可以被信任;有些关系则让人长期警觉,让身体不断准备防御。前者可能成为压力的缓冲,后者则可能成为压力本身。
这也是为什么,孤独的反面不是热闹,而是支持。不是身边有多少人,而是有没有关系能让身体放松下来。
社会支持:不只是安慰,也是一种生理缓冲
人为什么需要关系?
一个常见答案是:因为人需要陪伴,需要被理解,需要情感支持。
但从身体角度看,社会支持不只是心理安慰,也会影响压力系统、免疫状态、饮食行为和微生物组。
研究指出,强社会网络和支持性关系可以改善心理健康,进而影响个体的生活方式选择。处在支持性社会环境中的人,更可能采取健康行为,包括均衡饮食和良好卫生习惯,而这些行为都可能有利于微生物生态。
情感支持和社会网络支持,也与更好的地中海饮食依从性相关;而这种饮食模式中的充足营养,有助于维持肠上皮屏障、支持黏膜免疫,并为微生物代谢提供营养来源,从而帮助维持肠道微生物组稳态。
换句话说,社会支持可能先影响一个人如何吃饭、如何照顾自己、如何应对压力,再进一步改变肠道微生物所处的生态条件。
编辑
慢性压力:如何从关系进入肠道
社会互动还可以通过影响免疫系统,间接影响微生物组成。
社会关系的质量,例如友谊或冲突,与C 反应蛋白(CRP)等系统性免疫生物标志物水平显著相关。
在压力状态下,大脑还会通过直接的激素和神经信号,进一步调节外周免疫介质的合成,例如 IL-18。这些炎症因子的波动可以改变肠道微环境,从而对人体微生物组产生实质性影响。
也就是说,关系中的冲突和压力,并不是抽象地让人难受。它可能通过免疫系统进入身体,再通过炎症信号改变肠道微生物生活的环境。
研究表明,强社会支持可以减弱与社会痛苦相关脑区的过度激活,包括背侧前扣带皮层(dACC)和布罗德曼 8 区(BA 8)。同时,它也有助于降低个体面对社会压力源时的皮质醇水平。
编辑
当社会压力被大脑识别,身体会启动下丘脑-垂体-肾上腺轴。HPA 轴被反复激活后,皮质醇、免疫反应和炎症状态都可能随之改变。而这些变化,最终会影响肠道环境和肠道微生物群的平衡。
从乳杆菌到犬尿氨酸:压力的代谢痕迹
压力会扰乱肠道微生物平衡,这一过程可能由肠-脑轴介导。慢性压力可以减少有益菌,例如乳杆菌,同时升高循环中的神经活性代谢物,例如犬尿氨酸;这些变化与后续行为改变有关。
恢复乳杆菌丰度,并纠正相关代谢通路的干预,可以逆转这些效应。
编辑
当然,这并不意味着所有压力问题都能被简化成补充乳杆菌就能解决,人的情绪、行为和社会处境远比单一菌群变化复杂。这里提供了一个重要窗口。
心理压力可能会被身体翻译成菌群和代谢变化;而这些变化,又可能进一步参与行为和情绪反应。
肠道菌群反过来影响行为
微生物组也可能反过来影响行为、情绪和社会互动。
研究显示,社会连接可以增强肠道微生物群多样性,并稳定其组成;这种变化还可能进一步反馈调节社会行为。原文特别提到,这种双向调节可能由某些特定细菌物种介导,例如粪肠球菌(Enterococcus faecalis)。
粪肠球菌可能通过抑制 HPA 轴的过度激活,下调相关脑区的神经活动,从而参与社会行为调节。
也就是说,社会行为、压力系统和微生物组之间,可能不是单向关系,而是一个相互调节的回路。
编辑
微生物组研究并不是在鼓励人盲目社交,也不是说越多人际接触越好。它提醒我们的是:人类需要链接,但这种链接最好有质量。
这里需要区分孤独和独处。
一个人可以独处而安定,也可以在人群里感到孤独。
孤独危险的地方在于当这种状态持续太久,孤独就会从心理经验,变成生理环境。它进入压力轴,免疫反应,肠道微生态,也进入一个人对世界的基本感受。
孤独和压力让我们看到,微生物组受到的不只是饮食影响,也受到社会关系的塑造。但关系并不是现代人压力的全部来源。通勤、办公环境、绿地缺失、加工食品、污染、噪音,以及城市生活持续的速度与竞争,同样在重塑我们的身体。当视角从人际关系进一步扩展到城市环境,一个新的问题出现了:城市,正在怎样重塑我们的微生物组?
如果说家庭和亲密关系改变的是人与人之间的微生物交换,那么城市改变的,则是人与环境之间的微生物关系。
城市是身体的外部生态
我们通常把城市理解为生活背景。它是房子、街道、地铁、写字楼、商场、学校、医院和便利店;是通勤路线,是外卖半径,是空气质量,是噪音,是绿化面积,也是一个人每天被迫适应的生活节奏。
编辑
从微生物组角度看,是一套外部生态系统。
城市化与微生物多样性下降有关,可能与加工食品摄入增加、污染物暴露、抗生素使用和久坐生活方式有关。工业化则进一步加剧这种趋势,因为农业实践中常使用抗生素和农药,而这些因素可能扰乱微生物生态。
城市,可能通过我们吃什么、吸入什么、接触什么、缺少什么,来改变身体里的微生物环境。
一个长期生活在城市中的人,接触最多的可能不是土壤、植物、动物和开放空气,而是建筑材料、空调系统、办公桌面、地铁扶手、消毒剂、塑料包装食品、汽车尾气、噪音、屏幕。
现代生活的微生物暴露,换了一种结构。我们并不是不接触微生物,而是更少接触自然环境中复杂、多样、共同演化的微生物。
室内化生活,离土壤越来越远
城市生活最明显的特征之一,是人的生活越来越室内化。
我们接触的是空调过滤后的空气、人工清洁过的地面、被消毒剂反复处理的桌面、长期封闭的房间和高度重复的人群流动。这样的环境当然减少了许多病原风险,但也可能减少了来自土壤、植物和自然空气的微生物多样性输入。
编辑
城市化与人体共生微生物多样性下降有关;尤其在生命早期,分枝杆菌(Mycobacteria)、乳杆菌等微生物暴露可能减少。这些变化可能影响免疫调节回路的正常发育,削弱调节性T细胞和调节性巨噬细胞的活性与功能,最终导致免疫失调。
这不是说这些微生物或生物暴露越多越好,也不是要回到低卫生水平的过去。
现代城市带来了清洁饮水、污水处理、医疗系统、疫苗、抗生素、食品供应和公共卫生,这是人类寿命延长的重要基础。城市让我们更安全,也让我们更单一。
早期生命需要与外部环境进行某种免疫训练。自然暴露减少,可能意味着身体少了一部分与世界共同训练免疫系统的机会。最好是在病原控制和生态多样性之间找到新的平衡。
“玩泥巴”也有利于健康?接触环境微生物群可能调节肠道菌群和免疫系统
绿地:城市里的微生物入口
在城市里,自然暴露并没有完全消失。公园、绿地、树木、草地、土壤、社区花园、河岸、户外活动等,仍然是城市居民接触环境微生物的重要入口。
研究显示,农村人群通常有更高的微生物多样性,这可能与传统饮食和更接近自然环境的互动有关。
“生物遗传学”假说表明,在自然环境中定期、间歇性接触空气中的生物化合物混合物,会抑制高度互联的PI3K/Akt/mTORC1信号通路。这抑制了相关的病理途径,有益于身心健康。
城市绿地并不等同于乡村自然。但它至少提供了一种补偿:在高度室内化、人工化、消毒化的城市生活中,绿地让身体重新接触到一部分外部生态复杂性。
编辑
从微生物组视角看,绿地的存在,也是城市居民接触环境微生物的重要界面。
环境污染物通过肠脑轴影响心理健康,精神益生菌或将发挥重要作用
城市不是微生物组问题的终点。
同一座城市里,有人靠近公园、绿地和新鲜食物;也有人长期暴露于高架桥、噪音、污染、加工食品、通勤和高压工作。
城市暴露从来不是平均分配的。于是,问题从城市如何塑造身体,进一步到了:不同阶层的人,究竟生活在怎样不同的微生物世界里?
微生物组不是只属于个人身体,不只关乎个人如何生活,它也关乎一个社会如何安排生活。
不同生活条件,会进入菌群结构
微生物组研究提醒我们,阶层也可能以更隐蔽的方式进入身体。
收入、教育和医疗可及性的差异,会影响微生物健康;尤其是童年时期的社会经济地位,可能对成年后的肠道微生物组成产生长期影响。研究显示,较低的父母教育水平和较低的当前社会经济地位,与拟杆菌属丰度降低有关。
拟杆菌属是人体肠道中非常重要的一类菌属,参与代谢、免疫和肠道屏障功能调节。它与克罗恩病和酒精性肝病等疾病存在密切关联。
吃什么,住哪里,睡多久,压力有多大,看病是否方便,是否有时间运动,是否有机会接触自然,是否从小就拥有稳定、安全、营养充足的生活环境。这些东西最终都可能在身体内部留下痕迹。
健康建议,也要落到现实里
我们常听到,要少吃糖,少吃油,多吃蔬菜,多吃全谷物,多运动,少熬夜,保持自律…这些建议本身没有错。
问题在于,它们默认每个人都拥有同等质量的选择条件。
事实上,不是每个家庭都有时间计划饮食、做饭、储存食材、研究营养搭配等。
这也是为什么把健康完全解释为个人自律,是不够完整的。
个人选择很重要,但选择本身也需要条件。一个人能否长期吃得更好、睡得更稳、动得更多、少滥用抗生素、及时获得医疗帮助,并不只取决于意志力,也取决于他所处的生活结构。
公共条件,也在塑造身体微生态
卫生、住房和抗生素管理的政策,在塑造微生物生态系统中发挥作用。
例如,过度拥挤的住房增加了病原体传播风险,减少了接触多种环境微生物的次数,从而破坏微生物的稳态。更大的城市绿地促进了全年接触环境微生物群,这有利于健康。
抗生素过度使用通常在无节制获取或调控不佳的人群中更为常见,已被证明会减少有益微生物,并导致抗生素耐药菌株的出现。
此外,突发的经济危机还可能影响弱势群体的身心健康,从而激活慢性压力通路,并通过神经内分泌免疫轴对微生物稳态产生不利影响。
好的公共条件,可以让健康选择变得更容易。
这些都会在无形中改变一个人每天面对的选择质量。
文化也会塑造身体边界
文化看起来像观念、习俗和礼貌,但从微生物组角度看,它也是一套规定身体如何接触世界的规则:我们如何吃饭,是否共餐,是否共住,如何拥抱,是否握手,如何清洁,如何理解干净等。
编辑
围绕卫生、食物准备和身体接触的文化实践,会影响微生物共享和传播模式。在集体主义文化中,共同进餐和共享居住空间更常见,微生物交换可能高于更强调个体边界的社会。
这并不是说哪一种文化更好。
更多微生物交换,可能意味着更多样的暴露,也可能带来更高的病原传播风险;更强的个人边界,可能降低某些感染风险,也可能减少一部分日常微生物接触。
未来的微生物组研究和健康干预,也不能脱离文化语境。需要进行跨文化比较,研究不同文化规范如何影响微生物传播和多样性。
以上的讨论,并不是要否定个人努力,而是可以更友好地理解自己和他人:健康行为的形成,往往受到食物可及性、居住环境、工作时间、医疗资源、健康素养和社会支持等因素共同影响。
这并不意味着命运被环境决定。健康不是一场完美主义竞赛,不是责备一个人为什么没有立刻做到最好,而是帮助他找到在当下条件里最可行的一步。而微生物组,正是一个仍然可被调整、可被重新塑造的入口。
微生物组的意义,就在于它让我们同时看见这两件事:一方面,生活环境确实会进入身体;另一方面,身体仍然保留着被重新照顾、重新调整、重新建立平衡的可能。
健康不是控制身体,而是重建共生
写到最后,微生物组改变的,或许不止于我们对细菌这个维度的看法,而是我们对健康的理解。
过去,我们常把健康理解成一种控制能力:
编辑
于是,健康很容易变成一场紧张的自我管理:吃得够不够干净,睡得够不够早,运动够不够多,菌群够不够好。但微生物组提醒我们,生命并不是靠绝对控制维持自身的。
一个健康的身体,不是没有压力、没有情绪波动、没有外界环境影响的身体。恰恰相反,它是一个能够与无数微生物、食物、关系、环境和变化不断协同,并在其中维持动态平衡的开放系统。
那么,什么是我们值得追求的?
也许不是把身体打造成一个精密控制的运作机器,而是让它成为一个更有韧性的生态系统。
照护身体,放下焦虑,不必把每一次饮食失控、熬夜都理解成失败;不再把身体当成敌人,不再把健康变成对自己的审判。
编辑
微生物组的可塑性告诉我们,它会被压力扰动,也能够被稳定的节律修复;会被加工食品影响,也能够被更好的饮食慢慢调整;会被孤独消耗,也能够在支持性的关系里重新获得缓冲。
从这个角度看,照护微生物组,并不是简单地执行某一套饮食法,它更接近一种生活方式的重建,让日常生活重新出现可以恢复生机的空间:吃得更丰富一点,睡得更稳定一点,找合适自己的补剂,多接触自然,给压力出口,也对长期内耗的关系按下暂停,让身体少一点无谓的防御。
一个更健康的社会,也应该让健康选择变得更容易发生:让新鲜食物更可及,人们拥有更多健康食物或营养补剂的选择,城市保留适当的绿化,科学的医疗和健康知识更容易抵达普通人,人们拥有被支持、被理解、被照护的现实条件。
观察菌群的变化,是在理解它的变化之后,建立一种更松弛的安全感:知道哪里可以调整,哪里需要等待,通过更稳定的节律、食物、理想的关系、友善的生活环境,慢慢把身体带回平衡。
最终,微生物组告诉我们的,也许不只是科学事实,而是一种更谦卑的生命智慧:人不是孤岛,身体也不是孤城。我们活在万物之中,也被万物塑造。
健康,更像是一门共处的艺术:与体内无数微小生命共处,与自己的脆弱和限制共处,与他人、城市、自然和时代共处。
健康,也是一种活得更有弹性,更有连接,更能在复杂的世界里保留恢复平衡的能力。
主要参考文献
Li J, Yang Y, Wang Y, et al. Society and the Microbiome: A Biopsychosocial Window Into Comprehensive Well‐Being: A Review[J]. Health Science Reports, 2026, 9(5): e72162.
Song Y, Maley A, Boyineni J, et al. Effects of co-housing and social isolation on the gut microbiota[J]. Physiology & Behavior, 2025, 299: 114980.
Marin, I., Goertz, J., Ren, T. et al. Microbiota alteration is associated with the development of stress-induced despair behavior. Sci Rep 7, 43859 (2017).
Wu, WL., Adame, M.D., Liou, CW. et al. Microbiota regulate social behaviour via stress response neurons in the brain. Nature 595, 409–414 (2021).
Bashan, A., Gibson, T., Friedman, J. et al. Universality of human microbial dynamics. Nature 534, 259–262 (2016).
Fan J, Zhou Y, Meng R, et al. Cross-talks between gut microbiota and tobacco smoking: a two-sample Mendelian randomization study[J]. BMC medicine, 2023, 21(1): 163.
谷禾健康
肠球菌属(Enterococcus)是厚壁菌门中一种革兰氏阳性球菌,常成对或短链出现,大部分物种无鞭毛,没有明显的荚膜。
其耐受性非常好,可在10至45°C的温度范围内生长,pH值范围4.6–9.9内生长,对胆汁盐也具有耐受性。目前,肠球菌属包含四十多种已知菌种,可以存在于各种环境中,包括人类、动物和昆虫的消化系统,食物、水源、土壤和一些植物中。
但在35-37°C下生长最佳,因此非常适合在人体肠道内定植。人体肠道中常见的肠球菌是粪肠球菌(E.faecalis)(90-95%)和屎肠球菌(E.faecium)(5-10%)。而粪肠球菌也是其模式菌种。
肠球菌可以发酵多种底物,包括葡萄糖、甘油、乳酸、苹果酸、柠檬酸、氨基酸和许多α-酮酸。能量产生的主要途径是葡萄糖通过糖酵解途径同质生成l-乳酸。粪肠球菌还可以通过降解粘蛋白来获取能量。
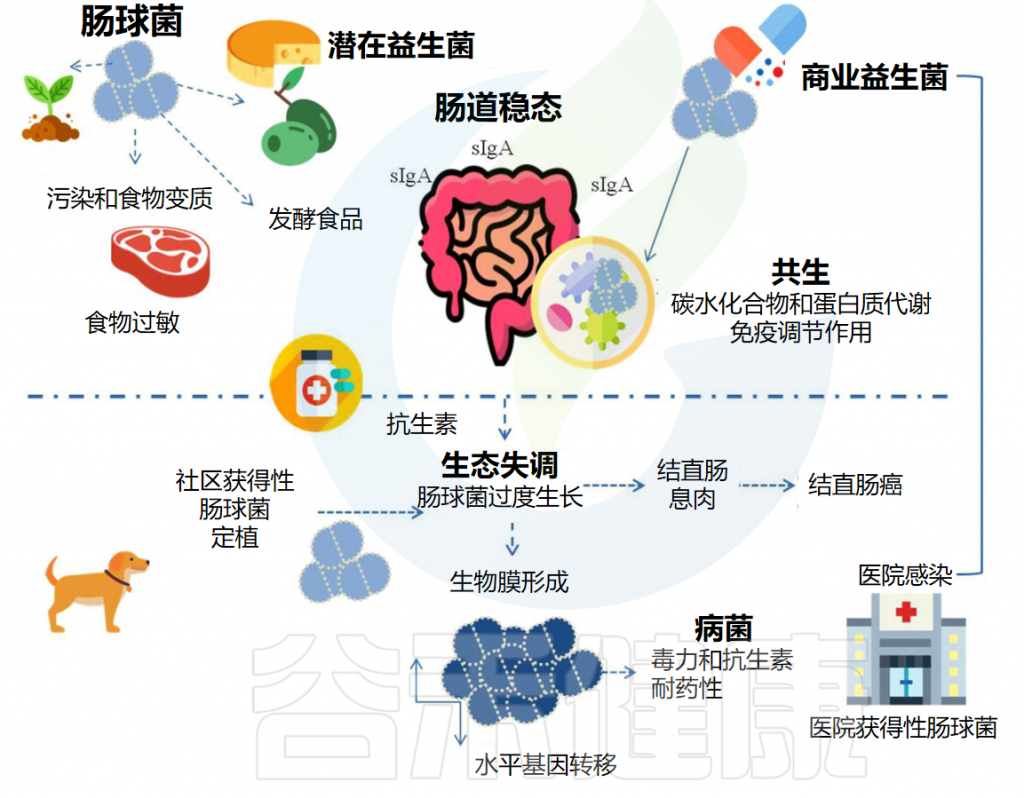
肠球菌具有“多种面孔”,其的健康益处可能是由于能够产生具有抑菌活性的“肠素”(细菌素),对李斯特菌、金黄色葡萄球菌等具有抑制作用。
进而可被用作天然的食品生物防腐剂。一些特殊的肠球菌株还被用作益生菌,具有不同有益特性:如刺激免疫力、抗炎活性、降胆固醇作用以及预防/治疗肠易激综合征和抗生素引起的腹泻,减少鼻窦炎患者的复发等。
然而,就像一枚硬币的两面,尽管它们具有促进健康的特性,但它们也具有有害特性。肠球菌也被视为机会性病原体,其表现出复杂的毒力机制,能够在各种宿主组织中定植,并对许多抗生素具有耐药性,包括四环素、β-内酰胺类药物、氟喹诺酮类药物、头孢菌素、磺胺甲噁唑/甲氧苄啶等,还可能导致耐药性的传播。
它们能够从胃肠道转移到各种组织和器官,进而造成感染或疾病。目前,肠球菌是革兰阳性菌中仅次于葡萄球菌属的重要医院感染病原菌,其感染最常见的为尿路感染,其次为腹部和盆腔等部位创伤和术后感染、败血症、心内膜炎和脑膜炎。此外由于其具有耐药性,所以感染治疗起来会更困难。同时,在心力衰竭、房颤、肥胖和炎症性肠病患者中发现了肠球菌属丰度的增加。
1
形态
肠球菌属(Enterococcus)是一种革兰氏阳性、不生芽孢的兼性厌氧菌,细胞呈球形或卵圆形,大小约在0.6~2.0μm×0.6~2.5μm,呈单个、成对或短链状排列。
大部分物种无鞭毛,但极少部分菌株可以通过稀少的鞭毛而运动。没有明显的荚膜。在35-37°C下生长最佳,因此非常适合在人体肠道内定植。
注:DNA G+C 含量(mol%):35.1–44.9
2
发现历史
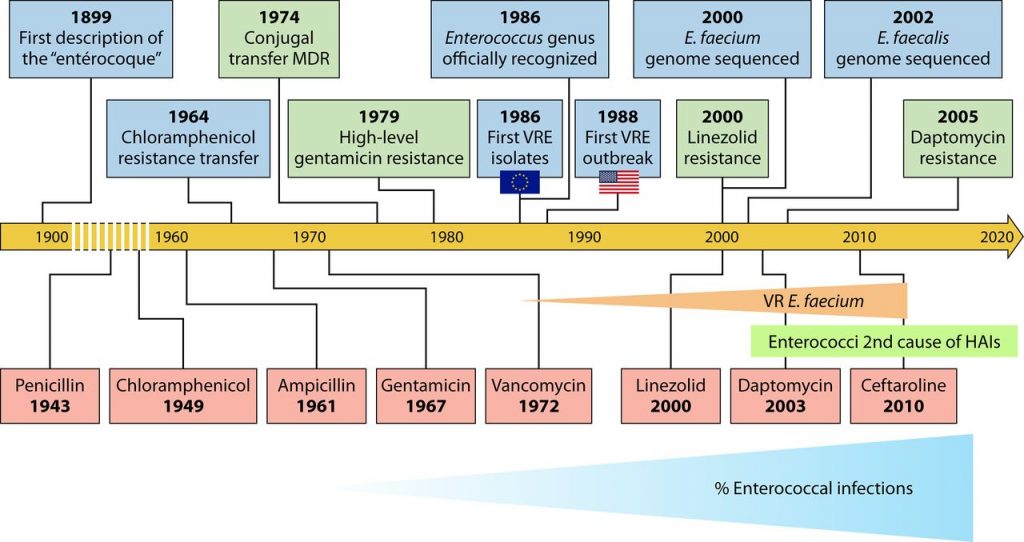
“肠球菌”一词最早于1899年提出,用于描述具有致病能力的肠道共生菌。由于形态和生化上的相似性,肠球菌曾被归为链球菌属。
1970年,基于生化和培养特性分析,建议将其归为独立的肠球菌属。1984年,这一建议得到广泛接受,并在1986年版《伯杰氏系统细菌学手册》中出现。
2009年,基于16S rRNA基因相似性提出肠球菌科,包括肠球菌属(Enterococcus) 、迷走球菌 (Vagococcus)、Tetragenococcus和Melissococcus。迄今为止,肠球菌属已包含五十多个物种。
肠球菌的发现历史
doi: 10.1128/CMR.00058-18.
3
常见物种及分布
肠球菌(粪肠球菌和较少的屎肠球菌)在出生后7-10天内定植于大多数健康母乳喂养婴儿的消化系统中。这些微生物主要来自母亲生殖道的生理菌群,但肠球菌也会动态地定植于剖宫产新生儿的胃肠道。
这些菌种对胆汁盐表现出抵抗力,这使它们能够穿过人体消化系统并在大肠中定植。成年人也会从某些食物中获得各种肠球菌种,例如猪肉、家禽和凝乳酶奶酪。
▸ 粪肠球菌为模式菌种
粪肠球菌(Enterococcus faecalis)是肠球菌的模式菌种。人体肠道中主要存在以下两种肠球菌:粪肠球菌(E.faecalis)(90-95%)和屎肠球菌(E.faecium)(5-10%)。人体中较少见的菌群还有E.casseliflavus、E.gallinarum和E.raffinosus。肠球菌很少从阴道和口腔中分离出来,如果发现,极有可能是病原体感染。
粪肠球菌(Enterococcus faecalis)
粪肠球菌(Enterococcus faecalis)是一种革兰氏阳性菌,它不能形成孢子,但对恶劣的环境条件相当耐受,在肠道免疫中起重要作用
粪肠球菌是人类肠道的正常居民,存在于大约90-95%的人中。这种细菌通常是生命早期定植于人类胃肠道的首批微生物之一,在肠道免疫系统的发育中发挥着重要作用。
Enterococcus faecalis T-110:这种粪肠球菌菌株与枯草芽孢杆菌TO-A和丁酸梭菌TO-A结合使用作为益生菌(B10-THREE)。这三种菡株一起可以减少手术患者的术后感染并缩短急性腹泻患儿的住院时间。
Enterococcus faecais YM0831:一项交叉研究发现,对健康人类受试者单次施用该菌株可显著改善血糖对蔗糖耐量试验的反应。
▸ 肠球菌的常见种
临床上分离率最高的是粪肠球菌(E.faecalis),其次是屎肠球菌(E.faecium)。除此之外,还有以下的菌种:
向上滑动阅览
鸟肠球菌(E.avium)
酪黄肠球菌(E.casseliflavus)
坚忍肠球菌(E.durans)
鸡肠球菌(E.galinarum)
芒地肠球菌(E.mundii)
恶臭肠球菌(E.maladoratum)
希拉肠球菌(E.hirae)
孤立肠球菌(E.solitarius)
棉子糖肠球菌(E.raffinosus)
假鸟肠球菌(E.pseudoavium)
粪肠球变异株(E.faecalis var)
Enterococcus gallinarum
Enterococcus gilvus
Enterococcus haemoperoxidus
Enterococcus hawaiiensis
Enterococcus hermanniensis
Enterococcus hirae
Enterococcus inusitatus
Enterococcus italicus
Enterococcus lactis
Enterococcus lemanii
Enterococcus malodoratus
Enterococcus moraviensis
Enterococcus mundtii
Enterococcus olivae
Enterococcus pallens
Enterococcus pernyi
Enterococcus phoeniculicola
Enterococcus plantarum
Enterococcus pseudoavium
Enterococcus quebecensis
Enterococcus raffinosus
Enterococcus ratti
Enterococcus rattus
Enterococcus rivorum
Enterococcus rotai
Enterococcus saccharolyticus
Enterococcus silesiacus
Enterococcus sp.
Enterococcus sp. 2011_Ileo_MS_B2
Enterococcus sp. C6I11
Enterococcus sp. SI-4
Enterococcus sulfureus
Enterococcus termitis
Enterococcus thailandicus
Enterococcus ureasiticus
Enterococcus ureilyticus
Enterococcus viikkiensis
Enterococcus villorum
Enterococcus xiangfangensis
environmental samples
▸ 粪肠球菌和屎肠球菌是人体肠道中常见的肠球菌物种
肠球菌种的分布会因环境、人类和动物而异。粪肠球菌和屎肠球菌在人类胃肠道中最为常见,人类粪便中的粪肠球菌数量为每克105至107个,屎肠球菌的数量为每克104至105个。
▸ 其他动植物中的肠球菌
牲畜中分离出的屎肠球菌和粪肠球菌丰度低于从人类粪便中分离出的。家畜中常见的肠球菌有屎肠球菌(Enterococcus faecium)、盲肠球菌(Enterococcus cecorum)、粪肠球菌(Enterococcus faecalis)、Enterococcus hirae和耐久肠球菌(Enterococcus durans);相比之下,鹑鸡肠球菌(Enterococcus gallinarum)和鸟肠球菌(Enterococcus avium)是罕见的。
粪肠球菌(Enterococcus faecalis)是狗和猫的直肠和扁桃体中常见的一种。而鸽子肠中最常见的是柱状肠球菌(Enterococcus columbae),其次是盲肠球菌(Enterococcus cecorum)。
此外,在爬行动物、蜗牛、采蜜昆虫、白蚁中也发现了肠球菌。肠球菌还可以从食物、植物、土壤和水中分离出来。虽然这些细菌被认为只是植物菌群的临时组成部分,但在良好的条件下,它们可以在植物表面繁殖。从植物中分离出粪肠球菌、屎肠球菌、海氏肠球菌(Enterococcus hirae)、Enterococcus mundtii、Enterococcus casseliflavus和硫肠球菌)。
它们通常从花中分离出来,而不是从芽或叶中分离出来。这表明昆虫可能参与了肠球菌的传播。
▸ 一些食物中也存在肠球菌
肠球菌是许多食物中常见的一部分,尤其是那些动物来源的食物,如牛奶和奶制品、肉类和发酵香肠。它们通常被认为是食品的二级污染物,通常在其腐败中起作用,尽管某些菌株对成熟和香气有积极的影响。
然而,随着某些类型奶酪的开发。肠球菌甚至被用作某些产品中的益生菌培养物。
另一方面,已经证明在发酵剂和食物肠球菌菌株中存在毒力因子,以及毒力决定因素向发酵剂菌株的转移。
▸ 一些具有致病性的肠球菌
以下是临床中发现具有致病性的常见肠球菌物种:
Enterococcus avium
Enterococcus gallinarum
Enterococcus faecium
Enterococcus faecalis
Enterococcus raffinosus
Enterococcus durans
Enterococcus columbae
Enterococcus villorum
Enterococcus dispar
4
生存条件
▸ 肠球菌的耐受性非常好,但人体肠道温度最适宜生长
肠球菌可在10至45°C的温度范围内生长,但大多数物种在35-37°C下生长最佳。许多(但不是全部)品种能在42°C甚至45°C以及(缓慢地)在10°C下生长。
粪肠球菌和屎肠球菌均可在60°C的高温下存活 30 分钟。
▸ 肠球菌耐高盐、高碱、高胆汁、干燥
肠球菌可在pH值范围4.6–9.9内生长,最适pH值为 7.5。它们还可耐受40%(w/v)胆汁盐并在其中生长。粪肠球菌可在6.5% NaCl 中生长,并具有阳离子稳态,这被认为有助于其抵抗pH值、盐、金属和干燥。
5
代谢
肠球菌可以发酵多种底物,包括葡萄糖、甘油、乳酸、苹果酸、柠檬酸、氨基酸和许多α-酮酸。能量产生的主要途径是葡萄糖通过糖酵解途径同质生成l -乳酸。
由于肠球菌可以利用多种糖源,因此它可以在多种环境中生存。在肠道中,粪肠球菌的大部分能量来自未吸收糖的发酵。粪肠球菌还可以通过降解粘蛋白来获取能量,粘蛋白是一种由肠道杯状细胞产生的高度糖基化的碳水化合物。
注:能量也可以通过一些氨基酸的降解获得,如精氨酸、酪氨酸、丝氨酸、苯丙氨酸等。
▸ 在不同环境条件下,可代谢产生不同的物质
在有氧条件下,葡萄糖代谢为乙酸、乙酰和CO2。在pH 5.0-6.0时,丙酮酸被粪肠球菌转化为乳酸,但在中性或微碱性的pH下,丙酮酸以2:1:1的比例转化为甲酸盐、乙醇和醋酸盐。
在营养缺乏的情况下,丙酮酸转化为乙醇和醋酸盐。粪肠球菌通过诱导的特异性苹果酸酶代谢苹果酸。葡萄糖酸盐被磷酸化为6-磷酸葡萄糖酸盐,然后异化为乳酸盐和二氧化碳。
粪肠球菌能将甘油氧化为乙酸、二氧化碳和少量过氧化氢和微量乙酰甲基甲醇;将棘皮酸水解成甘氨酸和苯甲酸。
▸ 肠球菌还具有的代谢通路
卟啉和叶绿素代谢
丙酸代谢
蛋白质输出
嘌呤代谢
嘧啶代谢
丙酮酸代谢
RNA降解
核黄素代谢
次级胆酸生物合成
链霉素生物合成
苯乙烯降解
硫代谢
牛磺酸和亚牛磺酸代谢
硫胺素代谢
色氨酸代谢
缬氨酸、亮氨酸和异亮氨酸的生物合成
缬氨酸、亮氨酸和异亮氨酸降解
维生素B6代谢
β-丙氨酸代谢
2-氧代羧酸代谢
丙氨酸、天冬氨酸和谷氨酸代谢
氨基糖和核苷酸糖代谢
精氨酸和脯氨酸代谢
精氨酸生物合成
抗坏血酸和醛糖酸代谢
不饱和脂肪酸的生物合成
生物素代谢
丁酸代谢
C5-支链二元酸代谢
氯代烷和氯代烯烃降解
氯环己烷和氯苯降解
柠檬酸循环(TCA循环)
芳香族化合物的降解
果糖和甘露糖代谢
半乳糖代谢
谷胱甘肽代谢
甘油脂代谢
甘油磷脂代谢
甘氨酸、丝氨酸和苏氨酸代谢
糖酵解/糖异生
乙醛酸和二羧酸代谢
6
毒力
肠球菌作为一种条件性致病菌,与其致病性有关的特性包括毒力因子和抗生素耐药菌株的增加。
毒力因子是一种效应分子,这些因子有助于其在宿主体内定植和引起感染,会增强微生物致病能力。肠球菌的毒力因子在其致病性中起着重要作用。
▸ 肠球菌能够产生的一些毒力因子
肠球菌中最常见且描述最详尽的毒力因子是聚集物质(agg、asa1)、溶细胞素(cyl)、明胶酶(gelE)、细胞外表面蛋白(esp)、粘附于胶原蛋白(ace、acm)和粘连样心内膜炎抗原(efaAfs和efaAfm)。
粪肠球菌和屎肠球菌主要毒力因子
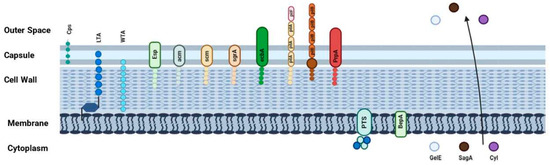
Sangiorgio G,et al.Pathogens.2024
毒力因子的具体作用机制
聚集物质(agg和asa1)是诱导肠球菌菌株表面蛋白的毒力因子,可在细菌结合过程中促进聚集体的形成,并介导与上皮细胞的特异性结合以进行定植以及携带毒力特性和抗生素抗性基因的质粒的交换。
此外,聚集物质可以与细胞外基质蛋白结合,如I型胶原、纤连蛋白和血小板反应蛋白。agg基因增加肠球菌表面的疏水性,诱导胆固醇定位于吞噬体并延缓与溶酶体囊泡融合。不过迄今为止,agg决定簇仅存在于粪肠球菌菌株中。
溶细胞素(或β-溶血素)是一种具有双重功能的蛋白质细菌素/溶血素,是肠球菌中研究最多的毒力因子。它是一种肽类毒素,能够通过在细菌靶细胞的细胞质膜上形成孔隙来裂解细胞 。由产生溶细胞素的肠球菌感染引起的死亡频率比不产生溶细胞素的肠球菌感染引起的死亡频率高5倍。
明胶酶是一种胞外锌金属内切肽酶(EC 3.4.24.30),参与明胶、胶原蛋白、β-胰岛素、血红蛋白、酪蛋白和其他生物活性肽的水解。明胶酶能够裂解纤维蛋白并损伤宿主组织,从而使细菌迁移和扩散,这使得其与肠球菌特别是粪肠球菌的毒力有关。此外,这种蛋白酶在生物膜的形成中起着重要作用。
细胞外表面蛋白(esp)是一种与细胞间粘附(特别是粘附于真核细胞和逃避宿主的免疫反应)有关的致病基因决定簇。该基因可促进定植,位于肠球菌属内高度保守的染色体区域,在屎肠球菌中最常见。
efaA毒力基因与心内膜炎密切相关。最为人所知的是粪肠球菌的efaAfs和屎肠球菌的efaAfm。
总体而言,屎肠球菌菌株中这些毒力因子的发生率低于粪肠球菌菌株。毒力最高的肠球菌种是在临床中的分离株,其次是食品分离株,然后是发酵剂菌株。
许多因素会影响肠球菌种的毒力,例如:
(1)在胃肠道(正常的栖息地)定植的能力;
(2)粘附于多种细胞外基质蛋白的能力,包括血小板反应蛋白、乳铁蛋白和玻璃粘连蛋白;
(3)粘附于尿道上皮、口腔上皮和人胚肾细胞的能力。
大多数感染被认为是内源性的,细菌通过肠道上皮细胞易位,然后通过淋巴结引起感染,从而扩散到体内的其他细胞。
7
耐药性
肠球菌对常用抗生素的耐药性是另一个重要的毒力特性,这极大地增强了肠球菌的致病性,使其成为可能引起感染的条件性致病菌。
▸ 肠球菌对许多常用抗生素具有耐药性
肠球菌对许多β-内酰胺类药物、氟喹诺酮类药物、林可胺类药物、头孢菌素、磺胺甲噁唑/甲氧苄啶和低浓度氨基糖苷类药物具有天然耐药性。
肠球菌还可以通过质粒或转座因子从其他微生物获得耐药性,对氯霉素、红霉素、四环素、青霉素、氨苄西林、大环内酯类、氨基糖苷类(如庆大霉素、卡那霉素、链霉素)和糖肽类药物尤其是万古霉素表现出耐药性。
▸ 对万古霉素具有耐药性的肠球菌会造成严重的健康后果
万古霉素耐药菌株会带来严重的健康问题,一项报告了7066例由肠球菌引起的菌血症病例,所有病例中有28%是抗生素耐药性的。万古霉素耐药肠球菌(VRE)的死亡风险为75%,而感染敏感菌株的患者死亡风险为45%。
数据显示,在从血液中分离的肠球菌中,2%的粪肠球菌和60%的屎肠球菌分离菌对万古霉素具有耐药性。
万古霉素耐药肠球菌(VRE)对临床医生来说是一个挑战,因为这种抗生素传统上被认为是治疗肠球菌感染的“最后手段”,因为它经常被用来替代过敏患者的青霉素、氨苄西林和氨基糖苷类药物。
因此,人们开始评估新药作为万古霉素的替代候选药物,例如喹奴普丁和达福普汀、恶唑烷酮和达托霉素。
▸ 其他动物和环境中也存在耐药性肠球菌,并可能影响人体
在世界各地的食用动物和环境中都发现了其他抗生素耐药性肠球菌。事实上,从牛(80%)、鸡(62-64%)、猪(57%)、动物源性食品(如白肉和红肉) 、未煮熟的食物(如生菜)、污水中分离出的肠球菌(粪肠球菌、屎肠球菌和鸡肠球菌)中观察到了较高的庆大霉素、卡那霉素、链霉素、四环素和糖肽耐药性。
肠球菌抗生素耐药性的主要机制
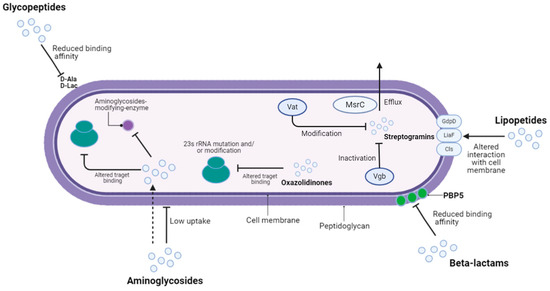
Sangiorgio G,et al.Pathogens.2024
总体而言,在所有这些不同的宿主和环境中都出现了高抗生素耐药性,表明耐药基因在菌株间存在传播。
8
细菌素
细菌素是核糖体合成的、细胞外释放的抗菌肽,对一些细菌物种有抑菌活性。
▸ 肠球菌能够产生具有抑菌活性的肠素
肠球菌产生的细菌素被称为“肠球菌素”,对其他肠球菌和菌群具有抑菌活性。肠球菌素分为四类:
(I类)羊毛硫抗生素肠素,如溶细胞素;
(II类)非羊毛硫抗生素肠素 ,有三个亚类,如肠素A(II-1类)、肠素Q(II-2类)和肠素B(II-3类);
(III类)其次是环状肠素,如肠素AS-48;
(IV类)高分子量肠素,如肠溶素A。
注:大多数已知的肠素属于II类。
肠球菌产生的细菌素
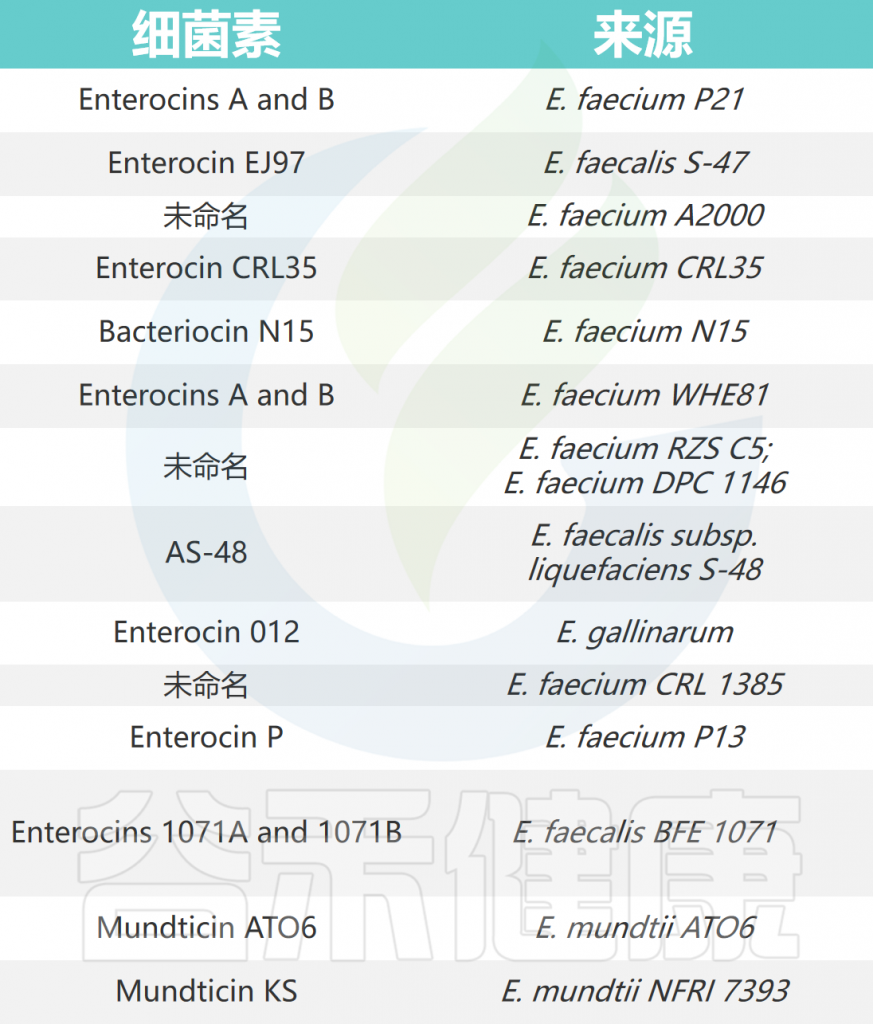
doi: 10.1099/mic.0.026385-0.
▸ 肠球菌素对李斯特菌、金黄色葡萄球菌等具有抑菌活性
已从乳制品、发酵肉以及蔬菜和植物中分离出产”肠球菌素”的肠球菌。它们对李斯特菌(Listeria)、梭菌(Clostridum)和金黄色葡萄球菌(Staphylococcus aureus)有抑菌活性。
E. faecium RZS C5 是一种天然奶酪分离物,具有抗李斯特菌特性。来自E. faecalis S-47的肠素 EJ97也表现出抗李斯特菌特性,浓度为20 AU ml−1时,6小时后细菌数量减少 ,24小时后完全抑制。
肠素 AS-48(由E. faecalis A-48-32 产生)可抑制罐装水果和蔬菜中冷藏和高温条件下凝结芽孢杆菌(Bacillus coagulans)细胞的生长。细菌素对抗革兰氏阴性菌的活性并不常见,但来自E. mundtii的细菌素 ST15已被证明可有效对抗一系列革兰氏阳性菌和革兰氏阴性菌,包括不动杆菌(Acinetobacter)、芽孢杆菌(Bacillus)、梭菌(Clostridium)、克雷伯氏菌(Klebsiella)、乳酸杆菌(Lactobacillus)和假单胞菌(Pseudomonas)。
▸ 肠球菌素如何发挥抑菌作用?
细菌素的杀菌作用被认为是由于细胞膜的通透性。细菌素的随机卷曲肽与细胞膜接触后形成螺旋结构,该结构融入并跨越膜,从而产生孔隙。这种作用方式已在肠素P中观察到。由此产生的孔隙导致K+离子泄漏、膜电位耗散和抑制氨基酸吸收。ATP 驱动的细胞吸收K+和细菌素介导的K+释放的循环会导致细胞死亡,从而抑制一些菌种的定值。
9
与其他菌的互作
肠球菌作为一类广泛存在于人类和动物肠道中的微生物,它们与肠道微生物群中的其他成员之间存在着复杂的相互作用。以下是谷禾通过查阅相关文献对肠球菌与其他肠道微生物群相互作用的总结:
▸ 屎肠球菌可以抑制李斯特菌、伤寒沙门氏菌等
屎肠球菌(Enterococcus faecium)是一种在人体中广泛存在的细菌,它能够产生一种名为肠球菌素的抗菌物质,这种物质具有广谱抗菌活性,可以抑制如植物乳杆菌(Lactobacillus plantarum)、单核细胞增生李斯特菌(Listeria monocytogenes)以及伤寒沙门氏菌(Salmonella paratyphi)等细菌的生长。
除此之外,一些研究表明肠球菌还可以抑制Peptoclostridium的生长与活性。
注:肠球菌因为这一特性可作为生物防腐剂,它们通过抑制病原菌和降解菌的生长,确保了产品的质量和安全。与传统的化学防腐剂相比,肠球菌素等具有更佳的生物相容性和环境友好性。
▸ 抑制肠球菌的细菌
Blautia producta 的共生菌株通过产生特定的抗菌化合物,可以抑制并排除粪肠球菌(E.faecium)。
此外,肠道中的枯草芽孢杆菌(Bacillus subtilis)释放一种抑制性化合物,可以阳止金黄色葡萄球菌的定植能力,或抑制肠球菌(Enterococcus faecalis)的毒力因子表达。
肠球菌(Enterococcus)是人类微生物群的天然组成部分。它们常定植于下消化道,口腔和生殖道中较少见。
★ 肠球菌是人体共生菌之一
人体肠道中约有106至107个肠球菌,结肠中发现的肠球菌高达1%,其中大多数是粪肠球菌(105-107 CFU/克粪便)或屎肠球菌(104 -105 CFU/克粪便)。
除了粪肠球菌(E. faecalis)和屎肠球菌(E. faecium)外,还经常分离出盲肠肠球菌(E. cecorum)和坚忍肠球菌(E. durans),偶尔也会检测到干酪肠球菌(E.caseliflavus)、海氏肠球菌(E. hirae)、鸡肠球菌 (E. gallinaroum)和鸟肠球菌(E. avium)。
参与营养物质代谢、激活免疫细胞
由于肠球菌在人体微生物群中存在大量,这表明它们可能在消化道中发挥重要作用。作为共生菌,它们参与营养物质(碳水化合物、脂质和蛋白质)的代谢,以及维持其生存环境的pH值,合成对正常功能很重要的维生素和其他代谢物,防止腐败细菌的定植和扩散,并对人体免疫系统(体液免疫和细胞免疫)产生影响。
研究发现,粪肠球菌(E.faecalis)可以起免疫调节作用,负责激活CD4、CD8(CD 分化簇)细胞和B淋巴细胞。
同时肠球菌还会影响肠道淋巴系统(肠道相关淋巴组织,是负责产生分泌性免疫球蛋白A(sIgA)的免疫器官)。sIgA 是肠道屏障的重要组成部分,它可以防止微生物粘附到上皮细胞上、中和细菌毒素、覆盖和凝集微生物,并具有抑菌作用。
作为一种益生菌
一些肠球菌菌株(如屎肠球菌M74和屎肠球菌SF-68)已被证明可作为一种安全有效的益生菌制剂。例如FortiFlora®和Cernivet®(含屎肠球菌SF68)和含粪肠球菌的Symbioflor®1。
• 缓解肠易激综合征和抗生素引起的腹泻
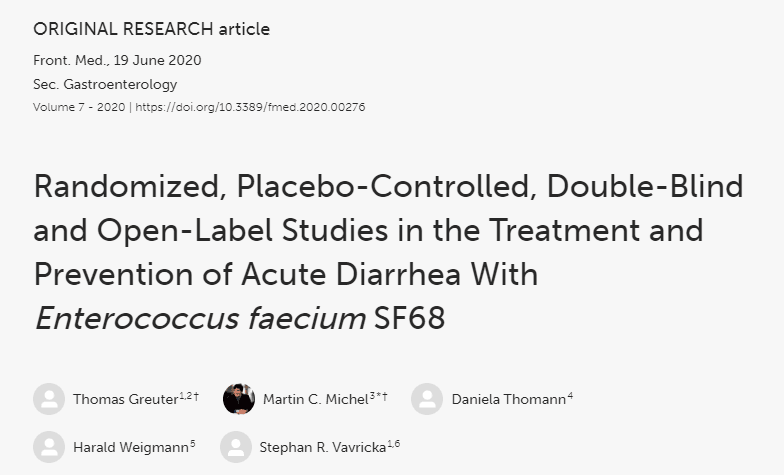
肠球菌益生菌可用于治疗或预防某些人类疾病,特别是在治疗腹泻方面。研究发现屎肠球菌(E.faecium strain SF68)可以缓解肠易激综合征症状和接受抗生素治疗的慢性肺结核患者的腹泻发病率,并预防了粘膜炎(可能是维生素缺乏的后果)。
使用屎肠球菌SF68 治疗腹泻被认为是抗生素治疗的替代方案。临床研究还显示,屎肠球菌对治疗儿童和成人肠炎有效, 对屎肠球菌SF68 治疗肠炎的“双盲”对照研究表明,腹泻持续时间和大便正常化时间显著减少。
• 减少鼻窦炎患者的复发
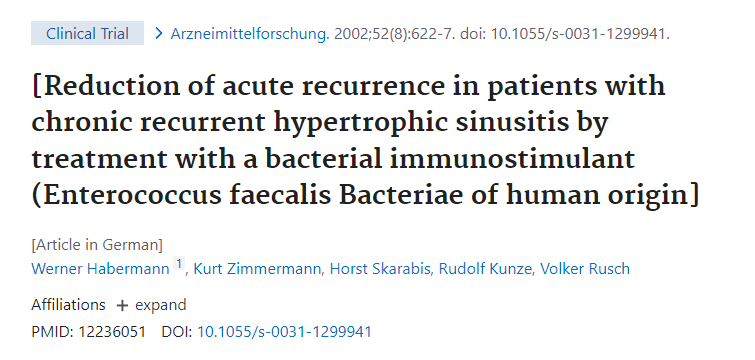
使用肠球菌还可以治疗慢性和复发性上呼吸道感染、鼻窦相关的慢性疾病(慢性鼻窦炎)。
一项双盲、安慰剂对照研究调查了157名患有慢性复发性鼻窦炎的患者在使用细菌免疫刺激剂(由人粪肠球菌细菌的细胞和自溶物组成)治疗期间急性复发的发生情况,并与使用安慰剂的患者进行了比较。结果表明,在使用粪肠球菌制成的免疫刺激剂后,复发的发生率(50次)约为安慰剂下观察到的复发次数(90次)的一半。
目前,粪肠球菌的益生菌制剂(有时富含大肠杆菌和乳杆菌)被推荐用于治疗鼻窦炎或支气管炎以及普通感冒等疾病。
注:在德国,粪肠球菌(DSM 16431) 以 Symbioflor 1的商品名作为药物出售,推荐用于治疗急性和复发性鼻窦炎或支气管炎。
• 一些菌种能产生丁酸,具有抗炎作用
已发现E. durans M4-5 能产生丁酸、短链脂肪酸 (SCFA),其可诱导显著的抗炎作用并有助于肠道上皮的完整性。
• 降低胆固醇水平
研究发现肠球菌(例如E.faecium M-74、E.durans KLDS)还具有降低胆固醇水平的特点。这些细菌产生一种水解酶,可催化胆汁酸解离过程,帮助胆固醇整合到细菌细胞壁中,或在酸性环境中帮助沉淀。
• 抗癌、免疫调节作用
此外,一些肠球菌还表现出抗诱变、抗致癌和免疫调节作用。
最近,菌株E. durans LAB18s还被推荐用作膳食硒补充剂的来源,而E.faecium LCW 44和E.durans 6HL 分别被证实对革兰氏阳性菌和革兰氏阴性菌具有很强的抑制作用。
益生菌E. faecium M-74 可用于治疗患有髓性白血病患者的胃肠道并发症。在小鼠模型中发表的另一份报告表明,海氏肠球菌(Enterococcus hirae)有助于形成抗癌免疫反应。
在食品中的益处
• 改善发酵乳制品的质地和口感
肠球菌存在于未经处理的牛奶、奶酪、肉类和植物产品(发酵蔬菜)等食品中。在食品工业中,精选的肠球菌菌株有助于改善发酵乳制品的香气、质地和口感。
肠球菌菌株可以将蛋白质降解为肽和氨基酸,分解柠檬酸盐,并产生具有脂解和蛋白水解特性的芳香物质。它们具有蛋白水解、脂解以及柠檬酸和丙酮酸代谢的能力,因此被用作乳制品的发酵剂。
• 一种天然的食品防腐剂
此外,肠杆菌通过产生肠素来抑制腐败微生物的增殖,这些细菌素可用作食品防腐剂。
由于它们对热处理(烹饪、巴氏灭菌或发酵)具有耐受性,因此它们也可用作食品生产中的天然防腐剂和卫生指标。
在养殖业中的作用
益生菌制剂也用于养殖业,以预防或治疗肠道疾病,或作为生长促进剂。
• 免疫调节作用、防止腹泻
例如,一些肠球菌益生菌被纳入饲料添加剂类别,用于稳定单胃动物和反刍动物消化道的微生物群落。屎肠球菌NCIMB 11181 和屎肠球菌DSM 7134 菌株已获批准作为牛和猪的饲料添加剂。益生菌屎肠球菌SF68®和粪肠球菌Symbioflor 1 也用于预防或治疗猪、家禽、牲畜和宠物的腹泻。屎肠球菌SF68对幼犬肠粘膜和消化系统发育具有免疫调节作用。
• 促进生长、提高代谢效率
此外,肠球菌对动物的生长和健康特征具有积极影响。用肠球菌益生菌属喂养猪,发现能减少肠道病原体。同样,给断奶后小猪口服屎肠球菌NHRD IHARA可提高血清和粪便中的IgA水平,改善小猪的生长。研究还表明,屎肠球菌能促进鸡的生长、肠道形态和盲肠微生物群的稳态。据报道,屎肠球菌还能提高肉鸡的代谢效率,降低炎症反应。
• 抑制水生病原体,改善鱼类生长
另一方面,许多研究表明肠球菌在水产养殖中具有有益作用。一些研究报道了屎肠球菌对水生病原体具有广泛的抑制作用,包括Yersinia ruckeri、哈维氏弧菌(Vibrio harveyi)、无乳链球菌(Streptococcus agalactiae)和维氏气单胞菌(Aeromonas veronii)。
此外,许多试验发现了将屎肠球菌添加到饲料中以改善鱼类生长和刺激免疫反应的功效。
肠球菌属(Enterococcus)普遍存在于人类及动物肠道内。正常情况下,肠球菌被认为是一种无害的共生菌,甚至被认为对许多胃肠道和全身疾病有积极作用。
然而,当与宿主的共生关系被破坏时,肠球菌可引起一些感染或疾病。目前,肠球菌是革兰阳性菌中仅次于葡萄球菌属的重要医院感染病原菌,其感染最常见的为尿路感染,其次为腹部和盆腔等部位创伤和术后感染、败血症、心内膜炎和脑膜炎。此外由于其具有耐药性,所致感染治疗困难。
注:目前几乎所有的院内肠球菌感染都是由粪肠球菌或屎肠球菌引起的。其中,粪肠球菌是致病性最强的菌种,但屎肠球菌的重要性日益增加,因为它通常对抗菌药物的耐药性更强。
肠球菌血流感染
肠球菌血流感染(BSI)与高死亡率相关。最近一项对加拿大医院的大型调查研究显示,住院患者肠球菌BSI发病率为每100000人 6.9 例,其中大多数病例由粪肠球菌引起(每100000人4.5例)。
• 肠球菌血流感染的死亡风险很高
在瑞士, 2008年至2014年间肠球菌血流感染发病率有所增加(每100000人9至14例),总体而言,院内肠球菌BSI的死亡率相当高,为25%至50%。
大多数肠球菌性血流感染病例被认为是肠球菌从肠道易位到血液所致。其他感染途径包括静脉注射、心内膜炎、尿路感染和脓肿。
肠球菌血流感染的死亡危险因素包括病情严重程度、患者年龄以及使用第三代头孢菌素或甲硝唑。
研究发现,感染溶血性、庆大霉素耐药粪肠球菌菌株的患者与感染非溶血性、庆大霉素敏感菌株的患者相比,三周内死亡风险增加5倍。
2
尿路感染
肠球菌是从尿路感染中分离出的最常见的革兰氏阳性菌,2011年至2014年期间,国家医疗保健安全网络报告了超过 20000 例病例。在这些病例中,超过50%是由粪肠球菌引起的,其次是“其他肠球菌种”(约30%)和屎肠球菌(约 20%)。
最令人担忧的是,约85%的屎肠球菌分离株对万古霉素具有耐药性,并且耐药分离株的比例每年都在增加。
3
心内膜炎
在肠球菌引起的感染中,感染性心内膜炎(IE)是治疗难度最大的感染之一。肠球菌占所有IE病例的10%至20%,其中大多数是由粪肠球菌引起的。
在感染性心内膜炎中,细菌在心内膜定植会导致组织内出现赘生物,并在细菌周围形成生物膜状基质,免疫系统或抗生素都难以穿透这些基质。
4
根管治疗失败
粪肠球菌(E. faecalis)是根管治疗失败的一个重要原因,部分原因是它对许多消毒剂和抗菌剂具有耐药性。
• 根管治疗常用的消毒剂无法完全杀灭粪肠球菌
在导致根管治疗失败的慢性和持续性根尖周围病变病例中尤其如此,24%~77%的病例中分离出粪肠球菌。氢氧化钙是根管治疗常用的消毒剂,已证实其本身无法完全杀死粪肠球菌,其他消毒剂如柠檬酸也是如此。
粪肠球菌能在根管内长时间耐受饥饿,并通过牙槽骨和牙周膜的血清复苏。获得充足食物后,粪肠球菌利用SprE和GelE蛋白酶及胶原结合蛋白Ace与牙本质结合并形成生物膜,进而影响根管治疗的效果。
注:一旦感染,最有效的治疗方法包括用次氯酸钠或洗必泰溶液长时间冲洗根管。在初始过程中使用洗必泰或次氯酸钠冲洗被认为是预防粪肠球菌感染根管和防止失败的最佳选择。
5
组织挫伤
肠球菌感染在宿主体内引发病理变化。这可能由宿主的炎症反应,或是粪肠球菌分泌的毒素、蛋白酶及有毒代谢副产物直接造成的组织损伤引起。
• 肠球菌脂磷壁酸具有炎症性
肠球菌脂磷壁酸(LTA)与多种生物过程有关,LTA的一些特性包括调节宿主的免疫反应和介导肠球菌粘附于宿主细胞。
研究发现肠球菌的LTA与革兰氏阴性菌的脂多糖一样具有炎症性。肠球菌结合物质(EBS)(至少部分源自 LTA)缺陷且蛋白质粘附素AS缺陷的粪肠球菌菌株在注射到兔子体内会诱发临床疾病症状。
• 肠球菌溶细胞素和蛋白酶对细胞具有一定毒性
肠球菌溶细胞素和两种蛋白酶(一种是锌金属蛋白酶(明胶酶)、一种是丝氨酸蛋白酶)是会导致疾病严重程度的分泌因子。溶细胞素的存在还被证实会促进粪肠球菌在血液中的出现。
这种毒素它既具有细菌素活性,又会对多种哺乳动物细胞类型有毒性。
使用兔眼内炎模型获得了由细胞溶素引起的病理损伤最直接和定量的证据。感染后24小时 β 波反应减弱和视网膜结构完全破坏明确证明了细胞溶素在组织病理学中的作用。
在无菌大鼠模型中,一种蛋白水解(Gel+)菌株表现出致龋活性,而三种非蛋白水解菌株几乎没有致龋性。
• 产生过量的过氧化氢造成细胞损伤
除了分泌蛋白外,粪肠球菌和屎肠球菌还被证明会产生有毒的氧代谢物,从而导致细胞或器官损伤。
一项研究表明,所检测的绝大多数(87/91)粪肠球菌菌株产生超氧化物(O2–),而屎肠球菌分离株产生超氧化物的频率较低。经研究推测,氧自由基的膜损伤作用可能会增强附近肠上皮细胞的细胞损伤。此外,细胞外超氧化物和过氧化氢的产生会损害结肠上皮细胞 DNA。
6
食源性肠球菌的危害
肠球菌的威胁不仅存在于临床感染。由于卫生条件差造成的污染导致食品中存在肠球菌也具有一定危害。粪肠球菌或屎肠球菌是造成手工和传统奶酪污染的最常见原因,但也发现了其他菌种(E.casseliflavus、E.durans、E.hirae和E.gallinarum)。
例如,从散装牛奶储罐中分离出E. casseliflavus和粪肠球菌。禽肉在加工过程中也可能被粪肠球菌和屎肠球菌污染,这种情况很常见。
• 对抗生素的耐药性会通过被肠球菌污染的食物传播
抗菌药物的广泛使用促进了耐药微生物的出现和传播。食物链是耐药性在环境和人类之间传播的关键因素。
人们发现临床材料和食物之间的细菌耐药性特征相似。最常见的是,这些细菌菌株对链霉素、红霉素、四环素和利福平表现出耐药性。
从即食食品中分离的肠球菌菌株中检测到氨基糖苷类、四环素类和大环内酯类药物的耐药基因水平转移。
研究显示,携带耐药基因的食源性肠球菌数量众多可能会显著降低抗生素治疗肠道感染的有效性。由于其高度适应能力,食物中的肠球菌会暂时或永久地定植于消化道,这增加了基因转移至肠道菌群的危险。
• 肠球菌会导致食物腐败
肠球菌也会导致食物腐败。它们会产生酪胺、组胺、苯乙丙氨酸、尸胺和腐胺等热稳定性胺,这些胺可引起过敏反应或中毒。
7
肠球菌在其他疾病中的丰度变化
通过查阅相关文献和谷禾的数据库,我们还发现肠球菌和以下疾病的联系:
• 移植物抗宿主病
一些细菌如肠球菌(Enterococcus spp.)与移植物抗宿主病(GVHD)高风险有关。
• 心力衰竭和房颤患者中丰度增加
与对照相比,心力衰竭患者肠道菌群中的肠球菌属(Enterococcus)丰度增加,在心脏病变患者中也观察到肠球菌属和肠球科的升高。
较多的基因和属种表明房颤患者体内可能存在多种有害细菌过度生长。瘤胃球菌(Ruminococcus)、链球菌(Streptococcus)、韦荣氏球菌(Veillonella)和肠球菌(Enterococcus)等在房颤患者中更为富集。
• 肥胖和炎症性肠病中肠球菌数量增加
肥胖是一种慢性代谢性疾病,引起肥胖的因素众多,如遗传因素、环境变化、生活和饮食习惯等,其中肠道微生物群的影响越来越受到人们的重视。
在属的水平上,分枝杆菌属、粪杆菌属、拟杆菌属、副拟杆菌属、粪杆菌属、毛螺菌属等显著减少,而梭菌属、芽孢杆菌属、布劳氏菌属、肠球菌属(Enterococcus)、萨特氏菌属、克雷伯氏菌属、柯林氏菌属、普雷沃氏菌属和乳酸杆菌属显著增加。
而在活跃期炎症性肠病与某些菌群的数量过多有关,如:
肠杆菌科(Enterobacteriaceae) ↑↑↑
梭杆菌属(Fusobacterium) ↑↑↑
咽峡炎链球菌(Streptococcus anginosus) ↑↑↑
肠球菌(Enterococcus) ↑↑↑
• 可能存在一定的致癌作用
肠道微生物群中的几种菌,这些细菌除了它们的致病性之外,还被可能对结肠直肠癌具有致癌作用,包括幽门螺杆菌、肝螺杆菌(Helicobacter hepaticus)、牛链球菌(Streptococcus bovis)、大肠杆菌、脆弱拟杆菌(B. fragiis)、败血梭菌(Clostnidium septicum)、粪肠球菌(Enterococcus faecalis)、具核梭杆菌(F.nucleatum)和牙龈卟啉单胞菌(Porphyromonas gingivalis),这些细菌都显示出潜在的致癌作用。
此外,肝外胆管癌患者体内也检测到大量肠球菌(Enterococcus)。
• 百岁老人肠球菌属含量较低
研究发现,与100岁以下人群相比,百岁老人体内肠道细菌(如拟杆菌属、脱硫弧菌属、瘤胃球菌科、乳杆菌、嗜粘蛋白阿克曼氏菌、发酵短杆菌属)含量较高,而Faecalibacter、普雷沃氏菌属、克雷伯氏菌属、链球菌属、肠杆菌属、肠球菌属含量较低。因此,我们推测肠球菌的丰度过高可能不利于健康。
肠球菌属(Enterococcus)是一种革兰氏阳性、兼性厌氧球菌,广泛存在于胃肠道中,在阴道或口腔中较少见。粪肠球菌(Enterococcus faecalis)和屎肠球菌(Enterococcus Faecium)是人类中最常见的菌种。作为共生菌,肠球菌定植于消化系统中并参与营养物质代谢及调节人类的免疫系统。
肠球菌还因其生物特性(酶和蛋白水解活性)而被用作食品发酵的发酵剂,或因其产生的抗菌细菌素(称为肠素)而被用作天然的食品生物防腐剂。一些特殊的肠球菌株还被用作益生菌,具有不同有益特性:如刺激免疫力、抗炎活性、降胆固醇作用以及预防/治疗肠易激综合征和抗生素引起的腹泻,减少鼻窦炎患者的复发等。
然而,就像一枚硬币的两面,尽管它们具有促进健康的特性,但它们可能具有有害特性。由于肠球菌菌株表现出复杂的毒力机制,使其能够在各种宿主组织中定植,并对许多抗生素具有耐药性,可能会导致耐药性的传播,肠球菌也被视为机会性病原体。
它们能够从胃肠道转移到各种组织和器官,进而造成感染或疾病。目前,肠球菌是革兰阳性菌中仅次于葡萄球菌属的重要医院感染病原菌,其感染最常见的为尿路感染,其次为腹部和盆腔等部位创伤和术后感染、败血症、心内膜炎和脑膜炎。此外由于其具有耐药性,所以感染治疗起来会更困难。同时,在心力衰竭、房颤、肥胖和炎症性肠病患者中发现了肠球菌属丰度的增加。
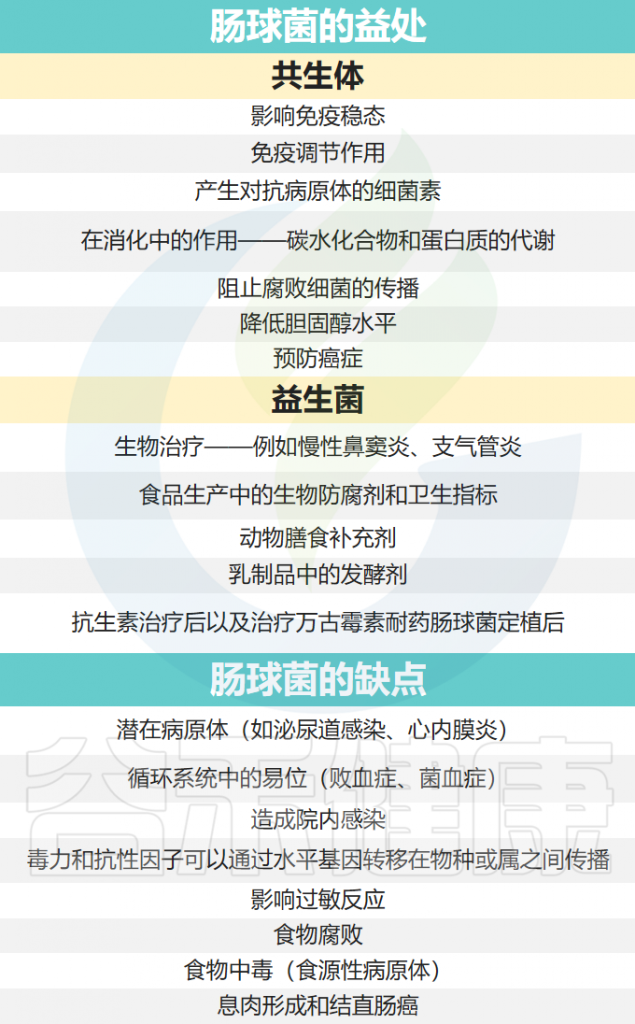
需要更深入地了解具体肠球菌种的健康益处、毒力特性,尤其是抗生素耐药性的增加,以便充分认识到肠球菌在改善健康和致病方面的复杂性。
通过深入理解肠球菌与宿主之间的微妙平衡,我们可以更好地利用这种微生物来促进人类健康,并开发新的治疗策略来对抗相关疾病。
主要参考文献
Krawczyk B, Wityk P, Gałęcka M, Michalik M. The Many Faces of Enterococcus spp.-Commensal, Probiotic and Opportunistic Pathogen. Microorganisms. 2021 Sep 7;9(9):1900.
Sangiorgio G, Calvo M, Migliorisi G, Campanile F, Stefani S. The Impact of Enterococcus spp. in the Immunocompromised Host: A Comprehensive Review. Pathogens. 2024 May 15;13(5):409.
García-Solache M, Rice LB. The Enterococcus: a Model of Adaptability to Its Environment. Clin Microbiol Rev. 2019 Jan 30;32(2):e00058-18.
Dubin K, Pamer EG. Enterococci and Their Interactions with the Intestinal Microbiome. Microbiol Spectr. 2014 Nov;5(6):10.1128/microbiolspec.BAD-0014-2016.
Kayser FH. Safety aspects of enterococci from the medical point of view. Int J Food Microbiol. 2003 Dec 1;88(2-3):255-62.
Byappanahalli MN, Nevers MB, Korajkic A, Staley ZR, Harwood VJ. 2012. Enterococci in the Environment. Microbiol Mol Biol Rev 76:.
Chajęcka-Wierzchowska W, Zadernowska A, Zarzecka U, Zakrzewski A, Gajewska J. Enterococci from ready-to-eat food – horizontal gene transfer of antibiotic resistance genes and genotypic characterization by PCR melting profile. J Sci Food Agric. 2019 Feb;99(3):1172-1179.
Fisher K, Phillips C. The ecology, epidemiology and virulence of Enterococcus. Microbiology (Reading). 2009 Jun;155(Pt 6):1749-1757.
Ramos S, Silva V, Dapkevicius MLE, Igrejas G, Poeta P. Enterococci, from Harmless Bacteria to a Pathogen. Microorganisms. 2020 Jul 25;8(8):1118.
Fiore E.Van Tyne D.Gilmore MS. 2019. Pathogenicity of Enterococci. Microbiol Spectr 7:10.1128/microbiolspec.gpp3-0053-2018.
Ben Braïek O, Smaoui S. Enterococci: Between Emerging Pathogens and Potential Probiotics. Biomed Res Int. 2019 May 23;2019:5938210.