-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
炎症性肠病(IBD)主要包括克罗恩病(CD)和溃疡性结肠炎(UC)。虽然其主要病变位于胃肠道,但IBD并非单纯的局部肠道疾病。持续的免疫炎症反应还可能累及皮肤、关节、眼睛及肝胆系统等,形成多种肠外表现(extraintestinal manifestations,EIMs)。
皮肤是IBD常见的肠外受累部位之一。 研究报道,约6%–10%的IBD患者存在相关皮肤表现,部分队列报告的比例可达10%–30%。这意味着,皮肤问题并不是IBD病程中偶然出现的伴随症状,而是值得临床关注的重要表现。
皮肤疾病不仅临床表现不同,与肠道炎症活动的关系也存在明显差异。
例如,结节性红斑通常与肠道疾病活动密切相关,而坏疽性脓皮病可能在肠道炎症得到控制后仍持续存在。部分皮肤病变甚至可能在IBD确诊之前出现。另一方面,治疗IBD的生物制剂虽然能够控制炎症,却也可能诱发新的银屑病样皮损等反常性皮肤反应。
因此,IBD相关皮肤表现并不能简单理解为肠道炎症在皮肤上的延伸。不同疾病可能涉及共同的遗传易感因素和免疫炎症通路,但其具体发生机制、临床病程及治疗反应又不完全相同。
那么,肠道与皮肤之间究竟存在怎样的免疫联系?为什么同样患有IBD,不同患者却可能出现截然不同的皮肤表现?
本文总结了IBD相关皮肤疾病的临床特征、诊断及治疗策略,并从遗传易感性、免疫炎症通路、淋巴细胞迁移和肠道微生物群等方面,探讨肠道炎症与皮肤病变之间的潜在联系。
理解这些皮肤表现的临床差异及其潜在机制,有助于提高IBD相关皮损的早期识别和鉴别诊断能力,并为兼顾肠道与皮肤炎症的治疗决策提供参考。
根据皮肤病变与IBD之间的关系,相关表现大致可以分为三类。
一类是疾病特异性皮肤表现,其病理特征与肠道疾病本身具有直接联系,代表性疾病为转移性克罗恩病。
第二类是反应性皮肤表现,主要涉及异常免疫炎症反应,包括结节性红斑、坏疽性脓皮病及Sweet综合征。
第三类是与IBD存在共同免疫机制的皮肤疾病,例如银屑病和化脓性汗腺炎。两者可能共享部分遗传易感因素和炎症通路,但并不意味着所有相关皮损均由IBD直接引起。
此外,部分皮肤表现与IBD治疗有关,例如抗TNF-α药物诱发的银屑病样皮疹。
这些疾病虽然都可能发生于IBD患者,但其临床特征、组织病理、与肠道活动度的关系,以及治疗策略存在明显差异。下面我们来介绍每一种相关皮肤病的表现。
结节性红斑:最常见的IBD相关皮肤表现之一
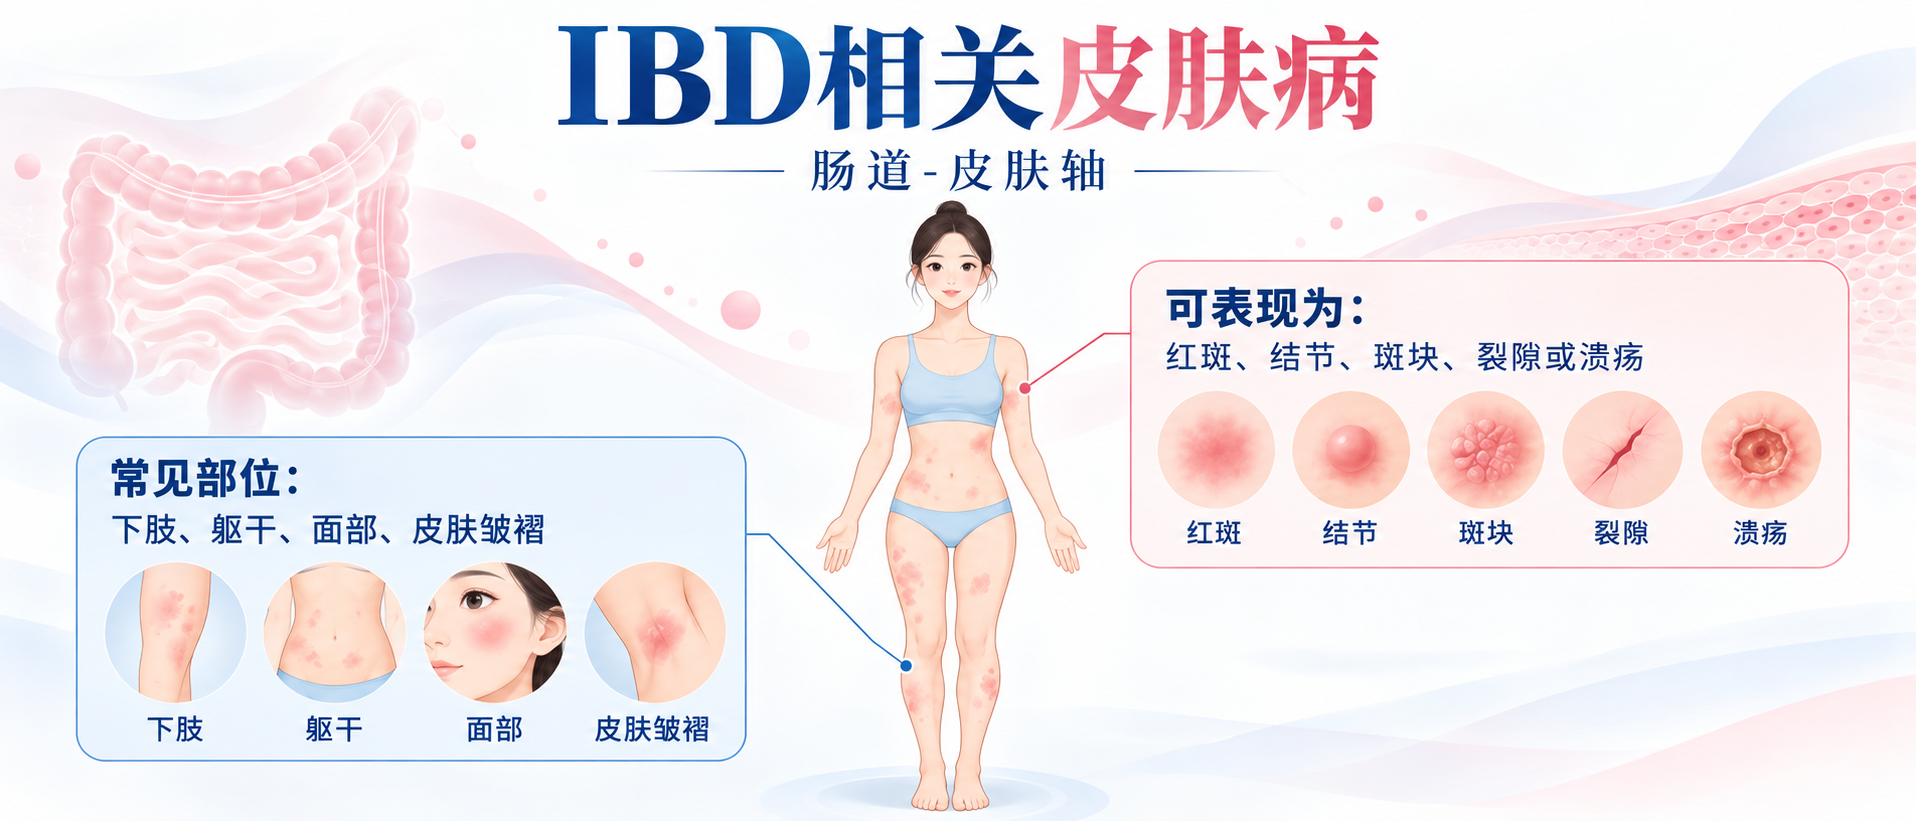
结节性红斑(erythema nodosum,EN)是IBD最具代表性的皮肤表现之一,约见于3%–10%的UC患者及4%–15%的克罗恩病患者。
小腿突然出现疼痛性红结节
结节性红斑通常急性起病,典型表现为双下肢,尤其是小腿胫前区域出现多个红色、隆起、疼痛明显的皮下结节。病变局部常有压痛及温度升高,部分患者还可伴有关节痛、发热等全身症状。
从病理学角度来看,结节性红斑属于脂膜炎的一种,主要累及皮下脂肪组织间隔,因此被归类为间隔性脂膜炎。早期病变可见中性粒细胞浸润,但通常不伴有血管炎。
与一些严重的溃疡性皮肤疾病不同,结节性红斑一般不会发生皮肤破溃,皮损消退后通常也不会留下永久性瘢痕。
结节性红斑活动往往与IBD肠道炎症活动平行
当IBD处于活动期时,结节性红斑可能出现或加重;随着肠道炎症得到控制,皮肤结节也常逐渐改善。因此,结节性红斑的出现有时可以为临床评估IBD活动状态提供线索。
并非IBD特有:还需要排除哪些疾病?
链球菌感染、结核、结节病、药物反应及其他自身免疫性疾病,同样可能导致类似皮损。
因此,对于疑似结节性红斑的患者,除观察皮损的形态、分布和压痛特点外,还需要结合病史及相关检查进行病因判断。常用的初步检查包括血常规、C反应蛋白等;如果怀疑存在结核或链球菌感染,则需要进一步进行针对性筛查。对于表现不典型的患者,可考虑皮肤活检。
如何治疗?控制肠道炎症是重要环节
对症处理可包括休息、抬高患肢及局部加压等措施。部分患者可能需要抗炎药物或其他系统治疗。
需要注意的是,非甾体抗炎药虽然能够缓解结节性红斑引起的疼痛,但可能加重IBD,因此使用时应谨慎评估。
对于与IBD活动密切相关的结节性红斑,随着基础疾病得到控制,皮损往往也能够逐渐改善。
坏疽性脓皮病:发生率较低,可能造成严重组织损伤
坏疽性脓皮病(pyoderma gangrenosum,PG)是另一种重要的IBD相关反应性皮肤表现,约发生于1%–2%的IBD患者。其特征为大型、疼痛的溃疡迅速形成,这些溃疡通常出现在腿部。一些研究表明,该疾病在女性中的发病率较高。
虽然坏疽性脓皮病的发生率低于结节性红斑,但其病变通常更加严重,可造成明显疼痛、皮肤缺损和瘢痕,对患者生活质量产生较大影响。
典型的临床表现:快速进展的疼痛性皮肤溃疡
病变早期可能表现为丘疹、脓疱或小范围皮肤破损,随后迅速扩大,形成边缘不规则、紫红色、潜行性的溃疡,周围常伴有红斑和硬结。
病变主要发生于下肢伸侧,但并不局限于腿部,也可累及腹壁,尤其是在腹部手术后愈合处的皮肤表面。
编辑
根据临床形态,坏疽性脓皮病还可分为不同类型。
一种是脓疱型,表现为疼痛的脓疱和环形溃疡;
一种是水疱型,会迅速形成水疱,最终导致溃疡和坏死;
一种是增生型,表现为边界清晰、较浅的溃疡,最终发展成外生性病变。
典型的或溃疡性坏疽性脓皮病表现为迅速形成的疼痛溃疡,边缘呈暗紫色,周围有硬结和红斑。
一个重要特点是创伤性反应
所谓创伤性反应(pathergy),是指皮肤受到轻微损伤后,出现异常强烈的炎症反应,并在损伤部位形成新的皮损。文献报道,约30%的坏疽性脓皮病病例可出现这一现象,即针刺、昆虫叮咬或手术切口等轻微损伤,也可能诱发新的溃疡,或使已有皮损进一步扩大。
注:超过一半的创伤性反应患者存在某种基础疾病,通常是炎症性肠病或关节炎。
这一特点对临床处理十分重要。对于疑似坏疽性脓皮病的患者,需要注意避免不必要的皮肤创伤,并在专业评估下开展伤口处理。
坏疽性脓皮病诊断是通过排除法来确定的
既基于临床表现,也基于组织学检查。除了一些非特异性的组织学特征外,没有其他特定的实验室指标可用于其诊断。
主要诊断标准包括:在排除其他导致皮肤溃疡的原因后,出现快速发展的、伴有疼痛的、坏死性皮肤溃疡,其边缘不规则、呈紫色且凹凸不平。
临床医生通常需要结合皮损形态、疾病进展速度、病史及病理结果,同时排除感染、血管性疾病和其他原因导致的皮肤溃疡。
目前,Delphi诊断标准、Su标准及PARACELSUS评分系统可用于辅助临床判断。
注:Delphi专家共识提出了诊断溃疡型坏疽性脓皮病的1项主要标准和8项次要标准,有助于临床医生减少误诊,并筛选适合纳入临床试验的患者。
在PARACELSUS评分系统中,皮肤活检仅被列为次要诊断标准。考虑到坏疽性脓皮病患者接受皮肤活检的比例存在差异,这一设置强调,相较于单纯依赖组织病理学结果,结合临床表现及病史进行综合判断,往往更有助于PG的诊断。
肠道炎症缓解,坏疽性脓皮病仍可能持续存在?
坏疽性脓皮病的治疗同样比结节性红斑复杂。除温和的局部伤口护理、感染监测和疼痛管理外,部分患者还需要接受全身性免疫抑制治疗。
糖皮质激素和环孢素是重要的系统治疗选择,对于部分难治性病例,也可能考虑抗TNF-α等生物制剂。
需要特别注意的是,坏疽性脓皮病的疾病活动不一定与肠道炎症同步。
部分患者即使IBD已经得到控制,坏疽性脓皮病仍可能持续存在或反复发作。因此,不能简单认为只要肠道症状缓解,坏疽性脓皮病就一定会随之好转。
这也是结节性红斑和坏疽性脓皮病在临床管理上的一个重要区别:
前者通常与肠道炎症活动密切相关;
后者可能具有相对独立的炎症过程,需要针对皮肤病变本身进行持续评估和治疗。
Sweet综合征:伴随全身炎症的急性皮肤表现
Sweet综合征(Sweet’s syndrome,SS),又称急性发热性中性粒细胞性皮病,是IBD相对少见的一种反应性皮肤表现。
突发疼痛性红斑,还可能伴随发热
其典型表现为突然出现的疼痛性红斑、斑块或结节,常分布于上肢、躯干、头颈部,并可能伴有发热、白细胞增多及炎症指标升高。
编辑
与结节性红斑主要累及皮下脂肪组织不同,Sweet综合征的组织病理学特点通常是真皮内出现明显的中性粒细胞浸润,而无血管炎证据。
如何确诊?临床表现与组织病理是关键
经典型Sweet综合征的诊断需要结合临床表现与组织病理结果。突发疼痛性红斑或结节,以及真皮内中性粒细胞浸润是主要诊断依据;发热、白细胞升高、伴随炎症性疾病及糖皮质激素治疗反应等,可提供进一步支持。
Sweet综合征由什么诱发?
IBD相关Sweet综合征既可能与肠道疾病的免疫异常有关,也可能由药物诱发。
例如,硫唑嘌呤(azathioprine,AZA)虽然是IBD治疗中使用的免疫调节药物,但也被报道与药物诱发的Sweet综合征有关。
部分TNF-α抑制剂同样存在既可能治疗、也可能诱发Sweet综合征的报道,提示相关免疫通路具有一定复杂性。
治疗如何选择?识别诱因与控制炎症
对于药物诱发的病例,识别可能的致病药物十分重要。治疗通常需要考虑糖皮质激素,其他选择包括秋水仙碱、碘化钾及部分免疫调节药物。对于难治性或激素依赖性病例,IL-1或TNF-α相关靶向治疗也受到关注。
转移性克罗恩病:发 在肠道之外的肉芽肿性炎症
转移性克罗恩病(metastatic Crohn’s disease,MCD)是一种罕见的克罗恩病特异性皮肤表现。
这里的“转移性”并非肿瘤转移,而是指在与胃肠道病变不连续的皮肤部位,出现与肠道克罗恩病具有相似组织病理特征的肉芽肿性炎症。
其组织学特点为非干酪样肉芽肿形成。
皮损形态多样,会阴部“刀割样裂隙”
MCD的临床表现具有较大差异,可以表现为红斑、结节、斑块、深部裂隙或溃疡,病变可累及下肢、躯干、面部及皮肤皱褶区域。
编辑
其中,外生殖器及会阴部受累是较具特征性的表现之一,尤其在成年患者中值得关注。病变可能表现为外阴、阴囊或会阴部水肿、深部溃疡、肥厚性改变以及具有特征性的刀割样裂隙。
容易漏诊?关键在了解病史与皮肤活检
由于这些皮损形态多样,且部分表现与感染性或其他炎症性皮肤疾病相似,MCD常面临诊断延迟的问题。
在组织病理学上,MCD也需要与结节病、皮肤结核及异物肉芽肿反应等疾病进行鉴别。
因此,诊断通常需要结合已知的克罗恩病病史、皮损分布及皮肤活检结果,必要时进一步排除其他肉芽肿性疾病。
应先评估药物治疗,再考虑手术
治疗方面,MCD可能需要局部或全身性糖皮质激素、免疫抑制剂、抗生素及生物制剂等综合治疗。
甲硝唑是文献中较常使用的抗生素之一,英夫利西单抗等抗TNF-α药物也被用于部分病例的诱导及维持治疗。
在免疫抑制剂方面,伊氟利松被一致认为是对 MCD 的胃肠道症状进行诱导治疗和维持治疗的有效药物。治疗选项包括类固醇(局部使用或全身使用)、甲硝唑、磺胺氯吡嗪、甲氨蝶呤、高压氧治疗、AZA以及抗TNF-α抗体等。
对于严重会阴部MCD,研究强调应在考虑手术干预前评估抗TNF-α治疗的可能性。对于药物治疗无效的严重病变,才可能进一步考虑手术治疗。
注:对于那些对药物治疗无反应的严重皮肤溃疡,可以考虑采用手术切除并结合口服硫酸锌的治疗方法。
牛皮癣:共 共享炎症通路,但治疗反应并不完全相同
银屑病(牛皮癣)是一种慢性免疫介导性炎症性皮肤病,主要表现为边界清楚的红色斑块,表面覆盖银白色鳞屑,可伴有不同程度的瘙痒。
斑块型银屑病是最常见的临床类型,通常累及头皮、肘部、膝部及臀间沟等部位。
编辑
编辑
除斑块型外,银屑病还包括点滴型、脓疱型和红皮病型等不同类型。部分患者可能出现掌跖受累,表现为角化过度、厚鳞屑或脓疱性病变。
临床上,银屑病通常依靠典型皮损特征进行诊断,必要时结合组织病理学检查。银屑病面积与严重程度指数(PASI)则常用于疾病严重程度和治疗效果评估。
银屑病与IBD,共享一条炎症通路
从遗传学和免疫学角度看,两种疾病均涉及免疫调节异常,并存在部分共同的遗传易感位点及炎症通路,尤其与IL-23/Th17轴有关。
IL-23参与维持Th17细胞相关反应,而Th17细胞产生的IL-17等细胞因子可促进局部炎症及免疫细胞募集。
抗炎药物也可能诱发银屑病?
不过,两种疾病共享部分炎症通路,并不意味着针对同一靶点的药物对肠道和皮肤具有完全相同的作用。
例如,抗TNF-α药物能够治疗部分IBD及银屑病患者,但在某些接受抗TNF治疗的IBD患者中,反而可能出现新发或加重的银屑病样皮损。
这种反常性皮肤反应,是IBD治疗中值得关注的问题,后文将进一步讨论。
化脓性汗腺炎:反复出现的深部结节、脓肿和窦道
化脓性汗腺炎(hidradenitis suppurativa,HS)是一种慢性、复发性炎症性皮肤疾病。
化脓性汗腺炎的典型表现是皮肤皱褶区域反复出现疼痛性深部炎性结节和脓肿,常见部位包括腋窝、腹股沟、会阴、肛周、臀部及乳房下方。
编辑
随着疾病反复发作,部分患者可能形成慢性窦道、瘢痕及局部组织结构改变。
与短期发生、可逐渐消退的普通炎症性皮损不同,化脓性汗腺炎往往具有长期反复发作的特点,慢性疼痛、渗出、瘢痕和活动受限可能显著影响患者生活质量。
临床诊断主要依靠典型皮损、解剖部位及反复发作的病程,目前缺乏单一的特异性实验室诊断指标。
化脓性汗腺炎与IBD存在关联
化脓性汗腺炎与IBD之间存在一定的流行病学关联,部分研究尤其关注化脓性汗腺炎与克罗恩病共存的情况。
在潜在机制上,两种疾病可能涉及共同的遗传易感因素、细胞因子调节异常、先天免疫反应及微生物群变化。
两种疾病同时存在,治疗该如何兼顾?
在治疗方面,化脓性汗腺炎可根据病情严重程度采用局部克林霉素、系统性抗菌药物及其他抗炎治疗。对于部分中重度患者,可考虑阿达木单抗等生物制剂。
当化脓性汗腺炎与IBD同时存在时,治疗方案还需要综合考虑两种疾病的活动情况以及不同药物的适应证与风险。
编辑
Al-Rubaye K,et al., Transl Gastroenterol Hepatol. 2026 Sep 19
上述多种皮肤疾病在临床表现上差异明显,但在发病机制方面却存在一些共同特征。
近年来,研究者提出了肠道–皮肤轴的概念,用于解释肠道与皮肤之间可能通过免疫系统、微生物群及其代谢产物形成的相互联系。
这一机制强调遗传易感性、肠道屏障损伤以及异常免疫反应,可能共同影响肠道和皮肤两个组织系统。
IBD与皮肤表现共同发生的潜在影响因素总览图
编辑
doi: 10.21037/tgh-2025-142
遗传易感性与肠道屏障损伤
遗传因素在IBD发生发展中发挥重要作用。
NOD2与ATG16L1:两个值得关注的IBD易感基因
NOD2是克罗恩病的重要易感基因,其编码蛋白参与细菌组分识别及先天免疫调节。
ATG16L1则与自噬过程及细胞稳态维持有关。
研究提示,NOD2和ATG16L1相关异常可能损害潘氏细胞功能,影响肠道屏障完整性,使肠道微生物成分更容易与宿主免疫系统接触。
肠道屏障受损,如何进一步激活炎症反应?
正常情况下,肠道黏液层、上皮紧密连接以及黏膜免疫系统共同维持肠道屏障功能。
在IBD中,这些屏障结构和功能可能发生改变,导致肠道通透性增加,从而促进微生物相关成分与免疫系统之间的相互作用,并进一步激活炎症反应。
肠道与皮肤的共同炎症易感性
IBD与部分免疫介导性皮肤疾病共享遗传风险位点,包括与IL-23相关的免疫调节基因。共同遗传背景可能使部分患者更容易同时发生肠道和皮肤炎症,但遗传因素本身并不足以解释所有皮肤表现。
Th1/Th17及炎症细胞因子:共同的免疫通路
在IBD中,肠道抗原提呈细胞受到微生物及炎症信号刺激后,可分泌TNF-α、IL-1、IL-6、IL-12和IL-23等细胞因子。
炎症信号如何持续放大?
这些炎症信号参与初始CD4⁺ T细胞活化及分化,促进Th1和Th17等效应T细胞反应。
Th1相关炎症反应涉及IFN-γ等细胞因子,而Th17细胞可产生IL-17、IL-22等炎症介质。IL-23则参与维持和增强Th17相关免疫反应。
当这些炎症通路持续激活时,可促进免疫细胞募集、局部组织损伤及炎症放大。
编辑
Al-Rubaye K,et al., Transl Gastroenterol Hepatol. 2026 Sep 19
促炎反应与免疫调节失衡
与此同时,调节性T细胞(Treg)及IL-10等免疫调节机制参与抑制过度炎症。
在坏疽性脓皮病等皮肤疾病中,研究观察到Th17相关炎症信号增强及Treg细胞数量下降,提示促炎反应和免疫调节之间的平衡可能受到破坏。因此,肠道与皮肤可能并不是发生了完全独立的两种炎症,而是在不同组织中表现出部分共同的免疫调控异常。
不过,不同组织对炎症细胞因子的依赖程度并不完全相同,这也是某些免疫靶向药物对肠道和皮肤具有不同治疗效果的原因之一。
免疫细胞迁移与中性粒细胞活化
除了共同的炎症通路,免疫细胞在不同组织间的迁移也是连接肠道与皮肤的重要潜在机制。
T细胞如何找到炎症部位?
正常情况下,T细胞的组织归巢受到黏附分子和趋化因子的调控。例如,MAdCAM-1/α4β7和CCL25/CCR9等分子参与淋巴细胞向肠道迁移。
在炎症状态下,趋化因子的表达可能发生改变,从而影响免疫细胞在不同组织间的分布。
CCL20/CCR6等趋化信号:连接肠道与皮肤的潜在线索
研究发现,肠上皮细胞和皮肤角质形成细胞均能够产生CCL20,而CCL20可募集表达CCR6的Th17细胞。
CCL27/CCL28与CCR10,以及CXCL9、CXCL10、CXCL11与CXCR3等趋化因子–受体系统,也可能参与肠道和皮肤炎症组织中的淋巴细胞募集。
这些发现为肠道炎症相关免疫细胞可能影响皮肤提供了机制解释。
中性粒细胞异常活化:NETs如何进一步放大炎症?
除淋巴细胞外,中性粒细胞的异常活化也具有重要作用。
IBD患者的部分循环中性粒细胞可能处于预激活状态,释放TNF-α、IL-1β等炎症介质,并通过中性粒细胞胞外诱捕网(NETs)及相关信号促进炎症放大。
编辑
中性粒细胞还可能影响巨噬细胞功能,促进其向促炎性M1表型极化,使局部炎症持续存在。
这种免疫异常在坏疽性脓皮病和Sweet综合征等中性粒细胞性皮病中尤其值得关注。
肠道菌群与微生物代谢产物
肠道菌群失调被认为是连接IBD与皮肤炎症的潜在因素之一。IBD患者的菌群异常不仅涉及保护性共生菌减少和条件致病菌增殖,还与肠道黏液层受损、上皮紧密连接异常及肠道通透性增加有关。这些变化可能使更多微生物相关成分接触免疫系统,进一步参与全身炎症反应。
部分研究发现,与健康人群相比,IBD患者粪便中的产短链脂肪酸细菌减少。研究人员指出,肠道微生物产生的短链脂肪酸能够支持具有抗炎作用的调节性T细胞(Treg)生成。
银屑病患者的皮损区域可出现菌群丰富度及多样性下降,Shannon多样性指数低于非皮损区域和对照样本。研究提到,白色念珠菌(Candida albicans)、马拉色菌(Malassezia)和金黄色葡萄球菌的异常增多可能与银屑病症状加重有关。
注:肠道菌群参与IBD皮肤表现的具体因果机制,仍有待进一步研究。
肠道微生物失调和饮食可能会
在银屑病中诱导轻度和慢性炎症
编辑
Liu S, et al., Cell Communication and Signaling, 2024
肠道通透性增加导致的“肠漏”可以诱导脂多糖(LPS)、脂蛋白(LTA)、外毒素(ET)和肽聚糖(PG)等强效炎症介质的释放,以及肠道细菌DNA进入血液。
柠檬酸杆菌感染可以刺激ILC3s产生IL-22和IL-17A,从而有助于黏膜免疫。ILC3s的功能也受到微生物代谢产物短链脂肪酸(醋酸、丁酸和丙酸)的影响。
乙酸和丙酸与结肠ILC3s上的FFAR2受体相互作用,激活AKT或ERK信号通路,并通过STAT3轴释放IL-22;
而丁酸则降低ILC3s的数量,同时,丁酸增强Treg细胞的分化,叶酸有助于维持Treg细胞,中长链脂肪酸支持Th1和Th17细胞的分化。
高盐饮食导致渗透压改变激活P38/MAPK通路,进而上调下游靶点NFAT5和SGK1,这反过来驱动转录因子RORγt、IL-23R、IL-17A和IL-17F的表达,导致Th17分化。上调的SGK1通过磷酸化Foxo1促进IL-23R的表达和稳定Th17分化。
IBD的治疗不仅涉及肠道炎症控制,也需要考虑相关皮肤疾病及治疗药物的不良反应。
随着生物制剂在IBD治疗中的广泛应用,一种值得关注的现象逐渐被认识:某些原本用于抑制炎症的药物,反而可能诱发新的炎症性皮肤表现。
抗TNF-α治疗与反常性银屑病
抗TNF-α药物:同时作用于肠道与皮肤炎症
TNF-α是参与IBD和部分皮肤炎症性疾病的重要促炎细胞因子。
英夫利西单抗、阿达木单抗等抗TNF-α药物能够用于IBD治疗,同时也可改善部分银屑病及其他免疫介导性皮肤病。
然而,一些患者在接受抗TNF-α治疗后,可能出现新发银屑病或原有银屑病加重,这种现象被称为反常性银屑病(paradoxical psoriasis)。
研究报道,相关皮损约发生于2%–5%的治疗患者,在IBD患者中可能更加常见。
TNF-α与IFN-α:反常性炎症背后的免疫调节机制
其潜在机制可能与TNF-α抑制后,浆细胞样树突状细胞(pDCs)产生IFN-α的调控发生改变有关,从而诱发银屑病样炎症反应。
这一现象说明,阻断某一炎症通路并不一定能够同时抑制所有组织中的炎症。部分情况下,免疫网络中的调节平衡发生改变,反而可能促进其他类型的炎症。
IL-17抑制剂与IBD发生或加重风险
另一个值得关注的问题是IL-17抑制剂。
IL-17抑制剂在银屑病、银屑病关节炎和强直性脊柱炎治疗中具有明确疗效,但也有新发或加重IBD的相关报道。
这一现象进一步说明,尽管肠道与皮肤共享部分炎症通路,但不同组织对同一种免疫靶向干预的反应可能存在差异。
因此,对于同时患有IBD与皮肤疾病的患者,选择生物制剂时不能仅依据其对单一疾病的治疗作用,而应综合评估肠道和皮肤两方面的获益与风险。
如何区分药物不良反应与IBD相关皮肤表现?
IBD患者在治疗过程中出现新发皮损,并不一定意味着肠道炎症加重。
可能的原因包括:IBD相关肠外表现、独立存在的皮肤疾病、药物诱发的反常性炎症,以及感染性皮肤病变。
尤其对于使用抗TNF-α药物或其他免疫抑制剂的患者,细菌、真菌、病毒及机会性感染风险也需要受到关注。
由于这些皮损在临床形态上可能存在重叠,诊断需要结合药物使用时间、皮损特征、肠道疾病活动状态及必要的检查。
明确病因后,才能决定是继续观察、增加针对皮肤病变的治疗,还是重新评估当前IBD用药方案。
肠道与皮肤需要共同管理
2024年欧洲克罗恩病和结肠炎组织(ECCO)发布的IBD肠外表现指南明确指出,结节性红斑通常与活动性肠道炎症密切相关。当皮损与IBD活动有关时,治疗的首要目标是控制基础肠道疾病,随着肠道炎症缓解,皮损通常也会逐渐消退。
坏疽性脓皮病的活动可能与肠道炎症不同步,即使肠道症状已经缓解,皮肤溃疡仍可能持续进展。ECCO指南因此建议,对于严重坏疽性脓皮病,应尽早考虑具有系统性抗炎作用的治疗,尤其是英夫利西单抗等抗TNF-α药物,同时配合适当的伤口护理和疼痛管理。
Sweet综合征需要关注是否存在药物诱发因素;化脓性汗腺炎则需要长期管理复发性炎症、窦道和瘢痕。对于接受抗TNF-α治疗后出现银屑病样皮损的患者,还需要判断其是否属于反常性皮肤反应。
因此,IBD相关皮肤病的管理应建立在尽量准确识别皮损类型的基础上,同时评估肠道疾病活动和皮肤病变的严重程度。
在临床实践中,可结合症状、C反应蛋白(CRP)、粪便钙卫蛋白以及必要的内镜检查、肠道菌群检测评估肠道炎症。
编辑
<来源:谷禾健康肠道菌群检测数据库>
皮肤方面则根据疾病类型观察皮损面积、溃疡愈合情况、结节或脓肿数量及复发频率。
注:对于病情复杂的患者,胃肠病科、皮肤科及临床营养团队的共同评估尤其重要。
从肠道入手:饮食和营养干预
除了常规抗炎和免疫调节治疗,肠道微生物群及其代谢功能也为IBD相关皮肤病的干预提供了新的研究方向。
前文提到,肠道菌群失衡可能通过影响屏障功能、微生物代谢产物及免疫细胞反应,参与系统性炎症的形成。从这一角度看,改善肠道微环境,有可能通过降低炎症负荷,间接影响皮肤炎症。
地中海饮食:可作为长期健康饮食的基础
2024年美国胃肠病学会(AGA)临床实践建议指出,在没有禁忌证的情况下,IBD患者可以采用以蔬菜、水果、全谷物、橄榄油、鱼类等为基础的地中海式饮食,并适当减少超加工食品、添加糖和过多盐分的摄入。
注:对于存在症状性肠道狭窄、营养不良或特殊食物耐受问题的患者,膳食纤维的种类、质地及摄入量需要个体化调整,不宜机械地增加高纤维食物。
对于IBD合并皮肤病的患者,合理的做法仍是根据肠道疾病类型、活动程度和肠道菌群检测报告中的营养状态选择有证据支持的饮食或营养治疗,并将皮损变化作为值得关注的临床观察指标。
如果说饮食和营养干预主要是通过改善肠道环境及基础疾病状态发挥作用,那么益生菌、营养补剂等策略,则试图更直接地影响肠道微生物群及其功能。
益生菌:银屑病研究已有积极信号
一项随机、双盲、安慰剂对照试验,纳入90名斑块型银屑病患者,研究由三种特定菌株组成的益生菌组合,包括:
Bifidobacterium longum CECT 7347;
Bifidobacterium lactis CECT 8145;
Lactobacillus rhamnosus CECT 8361。
经过12周干预,益生菌组达到银屑病面积与严重程度指数改善75%(PASI 75)的患者比例为66.7%,安慰剂组为41.9%。研究还观察到益生菌干预与肠道菌群组成改变及较低的后续复发风险有关。
回顾性分析显示,83.7% 的银屑病患者在接受唾液链球菌K-12治疗 24 周后,PASI 评分改善了 100%,并且随着治疗持续时间的延长,疗效持续改善。
一项随机对照试验发现,持续口服婴儿双歧杆菌35624(B.fantis)可显著改善银屑病的进展,并降低C反应蛋白和肿瘤坏死因子TNF-α的表达,显示出免疫调节作用。人体微生物群的作用不仅限于粘膜免疫系统,还延伸到全身免疫系统。
营养补充剂与植物活性成分:肠–皮轴干预的新方向
除饮食调整和益生菌外,Omega-3脂肪酸、维生素D及部分植物活性成分也受到关注,其潜在作用涉及炎症调节、肠道屏障功能和肠道微生物群。
Omega-3脂肪酸与维生素D: 鱼油具有一定抗炎潜力,但银屑病临床试验结果并不一致。大型VITAL试验发现,补充维生素D(2000 IU/天)可使总体自身免疫性疾病发病风险降低约22%。
姜黄素: 是目前较值得关注的植物活性成分。研究提示,姜黄素可能改变肠道菌群组成及微生物代谢功能。部分银屑病临床试验观察到PASI评分改善和炎症指标下降;UC临床研究也发现,其作为常规治疗的辅助干预具有一定潜力。
白藜芦醇: 动物研究发现,白藜芦醇能够改善肠道屏障功能,并改变拟杆菌属、Alistipes、Parabacteroides等菌群的相对丰度;另有研究观察到Blautia、Dorea等菌群增加。
槲皮素: 在咪喹莫特诱导的银屑病样皮炎小鼠模型中,槲皮素可减轻皮损,并降低TNF-α、IL-6及IL-17等炎症信号,提示其可能通过调节IL-23/Th17通路发挥作用,但仍缺乏充分的人体临床证据。
锌:对于化脓性汗腺炎,一项22人的初步研究发现,口服锌后8人完全缓解、14人部分缓解。2025年欧洲HS指南也提出,可考虑将葡萄糖酸锌用于轻中度化脓性汗腺炎的二线维持治疗,但长期高剂量补锌存在铜缺乏等风险。
肌醇+叶酸+镁:一项纳入20名伴糖代谢异常的化脓性汗腺炎患者的小规模研究发现,在常规抗生素治疗基础上补充肌醇、叶酸和脂质体镁,6个月后皮损严重程度评分(Sartorius评分)由38.3降至27.3,同时胰岛素抵抗指标也有所改善。
海藻硫酸化多糖SXRG84:一项双盲、安慰剂对照交叉试验,44名患有炎症性皮肤疾病的受试者每日口服2 g SXRG84、持续6周后,研究观察到IFN-γ、IL-1β、TNF-α等炎症指标的变化,约23%的参与者报告皮肤状况有所改善。
此外,乳清蛋白提取物XP-828L,以及辅酶Q10、维生素E和硒的联合补充,也在银屑病人体研究中显示出一定辅助治疗潜力。
IBD相关皮肤病变不仅是肠道炎症的肠外表现,也反映了肠道屏障、免疫系统与皮肤之间复杂的相互作用。不同皮肤疾病的发生机制和临床病程存在差异,因此需要兼顾肠道炎症控制与皮肤病变的针对性治疗。
随着肠–皮轴研究的深入,从肠道微生态入手干预皮肤炎症正成为值得关注的新方向。未来,结合肠道菌群检测、免疫指标及临床表现开展更精准的研究,或将为IBD相关皮肤疾病的个体化管理提供新的思路。
注:本文仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
主要参考文献:
Al-Rubaye K, Alrubaiy L. The overlooked surface: cutaneous manifestations of inflammatory bowel disease. Transl Gastroenterol Hepatol. 2026 Sep 19;11:113.
Miulescu RG, Costescu M, Marin RC, Mușetescu A, Muntean C, Roşca I, Adam II, Ilici A, Coman OA. The Gut-Skin Axis in Pediatric Atopic Dermatitis: Nutritional Modulation, Microbiome Interactions, and Emerging Precision Approaches. Nutrients. 2026 Sep 23;18(19):3138.
Zhao N, Cao W, Liu W, Wu L, Huang R. Gut Microbiota in Psoriasis: Evidence for Dysbiosis, Pathological Mechanisms, Causality, and Therapeutic Implications. Clin Cosmet Investig Dermatol. 2026 Oct 1;19:630661.
Demirbağ Gül B, Şentürk N. Elevated fecal calprotectin levels in psoriasis: association with disease severity. Cutan Ocul Toxicol. 2026 Sep 28:1-8.
He R, Zhao S, Cui M, Chen Y, Ma J, Li J, Wang X. Cutaneous manifestations of inflammatory bowel disease: basic characteristics, therapy, and potential pathophysiological associations. Front Immunol. 2023 Oct 26;14:1234535.
谷禾健康
肠易激综合征(IBS)是一种肠—脑互动障碍,表现为反复腹痛,并伴有排便频率或性状改变。约三分之一的炎症性肠病(IBD)患者会出现相关症状,导致生活质量下降、心理负担加重和日常功能受损,也容易与小肠细菌过度生长、胆汁酸吸收不良及炎症后并发症混淆。
传统观点曾把IBD与IBS视为”非此即彼”的关系——有器质性炎症就不应再诊断功能性疾病。然而越来越多的证据表明,即便炎症进入缓解期,患者仍可能经历持续而真实的肠道症状,其背后是肠道屏障、菌群、神经信号等多层面的微妙改变。本文将带您解析这一“重叠地带”。
IBS:全球性的常见肠道困扰
肠易激综合征(IBS)在全球范围内都属于高发病,全球患病率约为10%–15%。这意味着每十个人中就有一两人可能受其困扰。
中国约每十人中有一人患IBS,且多见于中青年
中国的流行病学调查显示,IBS患病率约为6.5%–10%,且呈逐年上升趋势。它可发生于任何年龄段,但以中青年(18–59岁)更为常见,女性患病率略高于男性。
IBS虽不致命,却会造成巨大的医疗资源消耗——反复就诊、多次检查、长期用药。此外,IBS患者常伴有焦虑、抑郁等心理共病,以及消化不良、慢性疲劳等功能重叠综合征,进一步增加了诊疗的复杂性。
肠易激综合征的表现及病因
这种疾病是一种肠道与大脑相互作用的障碍,其特征为排便习惯的改变(如便秘、腹泻或两者兼有),以及腹痛症状——这些腹痛在排便时可能会缓解,也可能加重。
其特点是常规医学检查无法发现明确的结构或生化异常。发病机制可用生物—心理—社会模型解释,即生物、心理和社会因素共同参与疾病的发生与发展(见下图)。
编辑
doi.org/10.3390/jcm15010116
IBD 患者中 IBS 的患病率
炎症性肠病(IBD)是胃肠道慢性炎症性疾病,主要包括克罗恩病和溃疡性结肠炎。两者在炎症部位、肠壁受累范围及临床表现等方面均存在差异。
注:与肠易激综合征类似,IBD的病因尚未完全明确,遗传易感性和免疫失调被认为是主要影响因素。
三分之一的IBD患者会出现IBS样症状
约三分之一的慢性溃疡性结肠炎患者存在IBS样症状,这一比例远高于普通人群。研究显示,IBD患者发生IBS样症状的风险显著升高,风险比(HR)高达20.1(95%置信区间,p=0.005),且克罗恩病患者的发生率高于溃疡性结肠炎患者。
更值得关注的是,部分被认为处于”静止期”或”缓解期”的IBD患者,若同时存在IBS样症状,其肠道中可能存在常规检查未能发现的亚临床炎症或低度炎症活动。因此,IBD患者中”真正的IBS”与”残留炎症”的鉴别,成为临床的一大挑战。
检验肠黏膜炎症的方法
内镜检查是评估肠黏膜炎症的“金标准”。以内镜评估时,IBS样症状的患病率为23.5%,低于采用疾病活动度指数和粪便钙卫蛋白评估所得的33.6%和35.1%。
但内镜和粪便钙卫蛋白均无法全面评估肠黏膜免疫激活。即使检查显示疾病缓解,患者仍可能存在:
此外,IBS 样症状的患病率还受IBS诊断工具影响。Manning标准和Rome I~IV标准均基于症状制定,最初主要适用于无器质性胃肠道疾病者,直接用于IBD患者可能存在局限。
IBD患者即使符合Rome标准,其症状也可能源于其他IBD相关病理生理过程,而非真正的肠—脑互动障碍(DGBI)。例如:
编辑
doi.org/10.3390/jcm15010116
具有挑战性的过渡性视角
传统观点认为,只有排除可解释症状的器质性胃肠道疾病(如炎症性肠病,IBD)后,才能诊断肠易激综合征(IBS)。
如今,主流神经胃肠病学逐渐认为,IBD患者的IBS样症状可能与疾病活动度不一致,即肠黏膜炎症不足以解释其胃肠道症状。
早在1983年,就描述了这种“功能性”与“器质性”疾病界限模糊的现象:33%的缓解期溃疡性结肠炎患者符合基于症状的IBS诊断标准。该研究将“缓解期”定义为仅使用柳氮磺吡啶维持治疗,且柔性乙状结肠镜检查未见出血、黏液或接触性出血。
Tips
传统上,IBS 与 IBD 被视为互相排斥:有 IBD 就不应诊断 IBS。但越来越多证据显示,即使 IBD 的炎症已得到控制、处于缓解期,患者仍可能存在难以由炎症解释的 IBS 样胃肠症状。研究发现约三分之一缓解期溃疡性结肠炎患者符合 IBS 症状标准,提示两类疾病的界限并非绝对。
IBD病情监测方法多样,全球临床最常用的四种方式是粪便钙卫蛋白检测、横断面影像学检查、胃肠道内镜检查和患者症状评估。
编辑
doi.org/10.3390/jcm15010116
粪便钙卫蛋白:无创的炎症”侦察兵”
粪便钙卫蛋白是反映中性粒细胞迁移至胃肠道组织的指标。胃肠病学会一般认可其为一种经过验证的、无创的生物标志物,可用于评估 IBD 的内镜下及组织学炎症活动。
粪便钙卫蛋白判断疾病活动度的敏感性和特异性,会因所采用的临界值不同而变化。一项荟萃分析显示:
美国胃肠病学会采用 150 μg/g 作为参考临界值,用于判断克罗恩病或溃疡性结肠炎患者的胃肠道症状是否与炎症加重有关。
中国的核心判断大致为(仅供参考):
需要注意的是,粪便钙卫蛋白对小肠炎症的敏感性可能不足,而小肠炎症在克罗恩病中较为常见。因此,粪便钙卫蛋白正常并不能完全排除肠黏膜炎症。
横断面影像学检查
横断面影像学检查,如磁共振小肠造影和肠道超声,可以较完整地观察小肠,并评估 IBD 相关的肠外疾病。
肠道超声可能成为克罗恩病影像监测的新选择
磁共振成像被认为是监测小肠克罗恩病的金标准影像学方法。近二十年来,研究者越来越重视利用磁共振评估小肠运动功能。该方法有助于判断炎症负荷,但目前不能预测患者在接受生物制剂治疗一年后的治疗反应或是否达到缓解。
由于反复进行磁共振检查存在等待时间长、费用高等问题,床旁肠道超声逐渐受到重视。它具有费用较低、检查迅速、患者耐受性较好等优点,适合用于IBD 的动态监测。
一项最新系统综述总结了针对克罗恩病和溃疡性结肠炎建立的 23 种肠道超声评分系统。其中,83%的研究以内镜检查作为金标准。23种评分中有13种经过验证,但只有7~8种在两个以上的独立患者队列中得到验证。
这些评分系统最常纳入的指标包括:
床旁肠道超声在 IBD 中具有重要作用,可以评估治疗反应、提供预后信息,并帮助指导临床决策。
例如:
内镜评估
临床实践中广泛使用溃疡性结肠炎 Mayo 疾病活动指数。其中,内镜评分主要依据以下表现进行评估:
最初的 Mayo 评分还包括两项患者报告结局:
其他研究团队还提出了以下替代性评分工具:
组织学评估
目前,对于溃疡性结肠炎和克罗恩病的组织学缓解尚无统一定义。因此,在 IBD 管理中,组织学缓解目前属于辅助目标,而不是首要治疗目标。
此外,组织学缓解是否能够带来明确的预后获益,目前仍未得到证实。
患者报告结局指标
目前已有20种不同的患者报告结局指标,被用于评估 IBD 疾病活动度。但其中没有任何一种完全符合美国食品药品监督管理局(FDA)推荐的标准。
只有两种评分是在患者参与下开发的:
患者报告结局可能受到抑郁和焦虑的影响
抑郁症状较重的患者,更容易被判定为患有活动性 IBD。因此,依据 PROMs 判断疾病活动度时,应结合患者的心理症状进行解释。
近年来开发的两种 PROMs 可能较少受到伴随心理疾病的影响:
小结
区分IBD 活动、IBS 样症状和真正的 IBS,不能依赖单一检查:
肠易激综合征(IBS)等肠—脑互动异常疾病,通常是多种因素共同作用的结果,包括:
肠易激综合征的病理生理机制
编辑
doi: 10.3390/ijms262110598.
研究显示,无论 IBD 处于活动期还是缓解期,均可能影响上述各个环节。这些共同的病理机制,可能解释了IBS 与 IBD 之间的关联。
肠道运动改变
两项重要研究考察了 IBD 患者的肠道运动功能。与健康人相比,溃疡性结肠炎患者表现为:
溃疡性结肠炎患者排便控制能力受影响
溃疡性结肠炎患者静息时直肠运动明显减弱,但肠腔扩张可引起炎症直肠异常强烈收缩,增加排便控制难度,甚至导致失禁。
活动期患者的直肠顺应性明显降低,即直肠扩张和容纳粪便的能力减弱;缓解期患者则与健康人无明显差异。因此,活动期患者排便频繁、急迫,可能与直肠顺应性降低和高敏感有关。
上皮屏障破坏与黏膜免疫功能异常
组织活检显示,与没有 IBS 样症状的缓解期 IBD 患者或健康人相比,IBS 患者以及伴有 IBS 样症状的缓解期 IBD 患者,其上皮屏障完整性相关标志物——如 ZO-1 和 α-连环蛋白(α-catenin)——的表达较低。
肠道免疫激活在肠易激综合症中的作用
编辑
Stoyanova M,et al.Applied Sciences.2025
溃疡性结肠炎患者肠道通透性增加
这与另一项发现一致:缓解期溃疡性结肠炎患者存在结肠细胞旁通透性增加;混合型 IBS 患者也可能出现类似改变,但程度相对较轻。
黏膜中嗜酸性粒细胞数量增加及其活化,以及肥大细胞等其他免疫调节因素,可能促进肠道通透性增高,即通常所说的“肠漏”现象。
肠道菌群失衡
关于肠道菌群失衡,可以查看谷禾此前发布过的相关文章内容:
肠道菌群失衡的症状、原因和自然改善
炎症性肠病中宿主与微生物群的相互作用
肠道菌群失调与炎症性肠病的关联
多项研究探讨了肠道菌群在 IBS 和 IBD 发生发展中的作用,以及通过调节菌群进行治疗的可能性。宏基因组鸟枪法测序能够依据以下特征区分 IBS 与 IBD:
不过,目前尚缺乏研究比较以下三类人群的肠道菌群差异:
未来研究有望确定:IBD 患者中的 IBS 样症状是否具有独特的菌群特征,并寻找能够缓解持续性胃肠道症状的新型微生物治疗靶点。
肠易激综合征的多种因素
编辑
Stoyanova M,et al.Applied Sciences.2025
肠道—中枢神经系统的信息处理
肠神经系统主要由两个神经丛组成:
肠道炎症可能导致肠神经元丢失,并引起肠神经节——即位于胃肠道壁内的神经细胞集合——发生形态变化。这些改变可能促进内脏高敏感,并参与 IBS 症状的形成。
此外,心理应激也可能改变:
这些变化可能是缓解期 IBD 患者仍持续存在 IBS 样症状的原因之一。
先排除,再诊断,分层管理
当 IBD 患者出现急性排便功能改变时,首先必须考虑IBD 复发或炎症活动加重。
排除肠粘连、结石等疾病
在排除黏膜炎症复发、确认不需要升级免疫抑制治疗后,应通过详细病史和有针对性的检查,排查其他急性胃肠道症状原因,如:
积极诊断判断IBS
对于长期存在胃肠道症状的患者,IBS 的诊断应采取积极诊断模式,而不是单纯依靠排除其他疾病。也就是说,应根据典型症状主动判断 IBS。这样有助于:认可并解释患者的症状体验、减少焦虑、更早进行针对性治疗。
编辑
doi.org/10.3390/jcm15010116
但在 IBD 患者中采用这种诊断方式更具挑战性,因为他们更容易出现一些能够模拟 IBS 的其他疾病,包括:
针对缓解期 IBD 患者 IBS的主要干预措施
目前,专门针对缓解期 IBD 患者 IBS 样症状、并在随机对照试验中进行研究的干预措施主要包括:
目前没有充分证据表明,缓解期 IBD 患者的 IBS 必须采用与无 IBD 人群完全不同的管理方式。因此,通常应依据国际指南中的 IBS 一般治疗原则,结合以下两类措施:
非药物治疗:饮食调整、体育活动、心理治疗等;
编辑
doi.org/10.3390/jcm15010116
药物治疗:神经调节药、解痉药、止泻药、泻药等。
在炎症性肠病中管理肠易激综合征的药理策略
编辑
doi.org/10.3390/jcm15010116!
应特别关注心理因素
在 IBD 患者中,焦虑和抑郁的发生率分别可达约 三分之一和四分之一。这两种心理状况都与 IBD 患者的 IBS 样症状密切相关。
情绪障碍病史尤其能预测溃疡性结肠炎患者出现 IBS 样症状,但这一关系在克罗恩病中并不明显。
治疗方面,除常规药物外,可考虑:
这些措施共同体现了 IBS 的生物—心理—社会综合治疗模式。
腹痛的管理
至少四分之一的缓解期IBD患者报告存在慢性腹痛,42%的IBD患者未能获得腹痛治疗。缓解期克罗恩病患者的腹痛可能比缓解期溃疡性结肠炎更常见(克罗恩病:轻度腹痛与中重度腹痛比例较高;溃疡性结肠炎:轻度腹痛23.4%,中重度腹痛10.1%)。并且缓解期IBD中存在腹痛与生活质量下降有关。
腹痛的非药物治疗
腹痛的非药物治疗中,较有前景的方法包括:脑—肠行为治疗(可改善整体IBS症状和腹痛,也可能缓解焦虑、抑郁等心理共病)、低FODMAP饮食、放松训练。
•脑—肠行为治疗:伴有慢性腹痛的 IBD 患者更容易出现焦虑和抑郁。已有至少六项研究评估行为治疗,其中较有前景的方法包括:放松训练;改变与症状相关的认知。
不过,英国 IBD Boost 研究发现,接受为期 12 次、由专业人员支持的线上认知行为自我管理课程后,实验组与常规护理组在 6 个月时的腹痛评分没有明显差异。
•低 FODMAP 饮食:在 IBS 的各种饮食疗法中,低 FODMAP 饮食的证据基础较为充分。该饮食通常分为两个阶段:
荟萃分析及两项针对缓解期 IBD 患者的前瞻性研究均支持低 FODMAP 饮食有助于减轻腹痛。
一项多中心随机非劣效性试验显示,地中海饮食可以作为 IBS 的一线饮食干预,但其在“IBS 合并缓解期 IBD”患者中的效果尚未得到确认。
•体育锻炼:已有证据支持体育活动有助于改善 IBS 症状,但运动是否能够有效治疗 IBD 患者合并的 IBS,目前仍未得到证实。
腹痛的药物治疗
•阿片类药物(不建议):不建议使用阿片类药物治疗慢性腹痛。没有证据表明阿片类药物能够改善克罗恩病患者的腹痛或生活质量。
此外,IBS 患者使用阿片类药物与更严重的心理损害及更多医疗资源使用有关,还可能诱发或加重其他肠—脑互动异常疾病。
•脑—肠神经调节药物:一项纳入28项随机对照试验的荟萃分析支持三环类抗抑郁药(TCA)用于改善 IBS 的整体症状或腹痛;选择性 5-羟色胺再摄取抑制剂(SSRI)可能也能在一定程度上缓解腹痛。
在伴有 IBS 的缓解期 IBD 患者中,TCA 可中度改善整体健康感;这些患者中超过80%存在腹痛。TCA 作用于多种受体,可能引起:口干、嗜睡、视物模糊、疲劳、便秘。
•解痉药:东莨菪碱、双环维林和薄荷油等解痉药,可能通过减少平滑肌收缩及降低内脏敏感性来缓解 IBS 症状。
但目前支持其用于 IBS 腹痛的证据质量“非常低”,间接比较显示其疗效可能不如 TCA。
便秘的管理
约50%的溃疡性结肠炎患者存在“溃疡性结肠炎相关便秘综合征”,有时也称为“近端便秘”。这种情况通常发生在活动性左半结肠炎或远端结肠炎患者中。
其表现包括:
IBD 相关便秘可能与结肠神经支配异常、黏液分泌减少及肛门直肠协同障碍有关。
便秘的非药物治疗
•饮食:由于缺乏充分证据,目前指南不推荐某种完整饮食方案,例如高纤维饮食,作为 IBD 便秘的明确治疗方法。现有大多数饮食建议的证据质量仅为“非常低”或“低”。
•体育锻炼:体育活动不足会增加便秘风险,运动可能改善便秘,并缓解 IBD 和 IBS 患者常见的疲劳。
•盆底生物反馈治疗:生物反馈治疗基于操作性条件反射,旨在帮助患者认识排便障碍,训练排便时增加腹内压并放松盆底肌,以及在治疗师指导下通过气囊模拟排便。其对有、无 IPAA 的 IBD 患者有效率分别约为 86% 和 70%。
便秘的药物治疗
可使用泻药治疗便秘,通常建议采取逐步加药的方式。泻药包括:
•渗透性泻药:氧化镁、聚乙二醇;
•刺激性泻药:番泻叶、比沙可啶;
•促分泌剂:鲁比前列酮、利那洛肽;
•选择性 5-HT4 受体激动剂:普芦卡必利。
腹泻的管理
腹泻是IBD患者最常见的症状之一。一项研究中,30.6%的患者每天排便超过4次。缓解期IBD腹泻可能与肠道菌群多样性降低及结肠推进活动增强有关。
腹泻的非药物治疗
针对 IBS-D 和功能性腹泻,欧洲专家对以下治疗达成较强共识:
体育活动以及益生元、益生菌或合生元也可能有帮助。
腹泻的药物治疗
美国胃肠病学会对以下药物给出了条件性推荐:
注释:
洛哌丁胺和 eluxadoline 是阿片受体激动剂,能够抑制肠道运动。没有胆囊,或已知/疑似胆道或胰管梗阻的患者,严格禁止使用 eluxadoline。
利福昔明是一种不可吸收抗生素,美国已批准其用于 IBS-D。五项对照试验的荟萃分析显示,其治疗获益明确,治疗获益人数需治疗数(NNT)为9;北美指南支持其用于 IBS-D。
Alosetron 是选择性 5-HT3 受体拮抗剂,FDA 批准其用于女性 IBS-D 患者,但目前没有充分的性别特异性理由说明它只能用于女性。另一种 5-HT3 受体拮抗剂昂丹司琼,也有较有力的证据支持其用于 IBS-D。
研究显示,IBS-D 患者可能比其他 IBS 亚型患者更容易对低剂量 TCA 产生反应。TCA 可能通过抗组胺作用改善腹泻。选择性 H1 受体拮抗剂依巴斯汀也被发现能够减少 IBS 患者稀便的次数。这提示组胺生成和肥大细胞活性可能参与非活动性 IBD 的持续性腹泻。
关于解痉药治疗 IBS-D 的证据,主要来自“整体 IBS 症状缓解”,而不是腹泻本身。某项比较不同剂型薄荷油与安慰剂的研究发现,三组在粪便性状和排便频率方面均无显著差异,提示薄荷油可能不能改善腹泻。
此外,在 IBD 患者中,解痉药使用与更高的阿片类药物使用率及持续性腹痛有关,即使校正疾病严重程度后仍然如此。因此,解痉药可能疗效有限,甚至可能加重部分症状,使用时应谨慎。
粪便失禁的管理
粪便失禁是指反复且无法控制地排出粪便,至少影响 14% 的 IBD 患者,发生率接近社区成年人的两倍。
排便习惯改变,尤其是腹泻,与粪便失禁密切相关。评估时,以下信息最好通过连续排便日记记录,而非仅依靠一次性问卷。
IBD 患者发生粪便失禁的原因可能包括:
粪便失禁的非药物治疗
非手术治疗包括:
手术或介入治疗可包括:
目前结肠造口术或肛门括约肌成形术已较少使用。
粪便失禁的药物治疗
腹泻和直肠紧迫感是粪便失禁的重要危险因素,因此控制腹泻是关键。可考虑的药物包括:
腹胀的管理
腹胀是患者主观感受到的腹部饱胀、肿胀或气体滞留,可发生于腹部任何部位。腹胀不同于腹部膨隆,后者表现为腹围明显增大,患者常形容为“像气球”或“像怀孕”。
至少20%的缓解期 IBD 患者有腹胀症状,其发生率与 IBS 患者无明显差异。
腹胀的非药物治疗
•低 FODMAP 饮食:在功能性消化不良和 IBS 研究中,与传统饮食建议相比,低 FODMAP 饮食能够改善腹胀和生活质量。在伴有 IBD 和肠—脑互动异常症状的患者中,腹胀可能是对低 FODMAP 饮食反应最好的症状。
•脑—肠行为治疗:虽然相关证据主要来自 IBS,但心理治疗可能对各种肠—脑互动异常疾病都有帮助,包括以腹胀为主要表现的疾病。
注:一项随机对照试验显示,完成为期8周的正念减压训练后,患者在课程结束3个月时的腹胀严重程度有所改善。
•生物反馈治疗:部分腹胀或明显腹部膨隆患者存在腹膈协同失调,即膈肌收缩、腹壁放松的一种适应不良性神经肌肉反应。
一项研究提示,在对饮食干预没有反应的腹胀患者中,超过60%存在排便障碍特征,而这些患者可能从盆底生物反馈治疗中获益。
腹胀的药物治疗
利福昔明可能缓解腹胀,但 FDA 目前仅批准其用于 IBS-D 的两周疗程。
荟萃分析支持部分便秘患者使用解痉药和促动力药;促分泌剂及SSRI也可能有助于改善腹胀。
肠易激综合征(IBS)型症状影响了大约三分之一的慢性溃疡性结肠炎患者,严重降低了患者的生活质量,同时也给医生带来了诊断上的挑战。
医生需将其与小肠细菌过度生长、胆汁酸吸收不良、乳糜泻及其他炎症后并发症相鉴别。IBS 与溃疡性结肠炎的共存体现了功能性与器质性胃肠疾病的复杂“共生关系”,可能与残余炎症、脑肠信号异常、肠道菌群失调及心理社会因素共同相关。
未来研究应结合多种生物标志物进行评估,包括黏膜免疫表型、微生物群与代谢特征、神经影像学及屏障功能指标,以建立不单纯依赖症状的单一诊断方法。
临床上应采取以症状为中心的积极诊断策略,同时仔细排除活动性炎症,并据此制定治疗方案。现有证据支持参照一般 IBS 管理原则,采用饮食干预、脑肠行为疗法和神经调节剂,并关注疾病的心理社会影响。
未来应通过更精准的生物标志物动态监测持续炎症,以改善诊断并优化治疗指导。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献:
Butt MF, Reghefaoui MH, Benedict AS, Reghefaoui M, Al-Jabir H, Shaikh A, Vojtekova K, Moran GW, Corsetti M, Aziz Q. Irritable Bowel Syndrome in Inflammatory Bowel Disease: An Evidence-Based Practical Review. J Clin Med. 2025 Dec 24;15(1):116.
Aggeletopoulou I, Papantoniou K, Pastras P, Triantos C. Unraveling the Pathophysiology of Irritable Bowel Syndrome: Mechanisms and Insights. Int J Mol Sci. 2025 Oct 30;26(21):10598.
Stoyanova, M.; Gledacheva, V.; Nikolova, S. Gut–Brain–Microbiota Axis in Irritable Bowel Syndrome: A Narrative Review of Pathophysiology and Current Approaches. Appl. Sci. 2025, 15, 6441.
谷禾健康
一个炎症性肠病(IBD)患者,刚确诊时,医生告诉他要注意饮食,于是他可能会经历这样一个过程:
先是开始少吃辛辣、油炸食品。
后来听说乳制品可能刺激肠道,于是戒掉牛奶。又看到有人说麸质不好,面包也不吃了。
再后来是粗粮、豆类、生冷蔬菜、水果、坚果
……
每一次腹痛、腹胀或者腹泻,都可能让一种新的食物进入“黑名单”。
编辑
这种现象并不罕见。2018 年一项针对 294 名荷兰成年 IBD 患者的调查显示:
编辑
这类数据并不能代表所有 IBD 患者,但足以说明:对许多人来说,饮食是疾病管理中最容易主动掌控的一部分。
问题也由此出现:如果某种限制能让人感觉好一点,那么限制得更多、更彻底,会不会更安全?如果症状减少了,是不是说明肠道炎症也控制住了?
科学界正在重新审视这个逻辑。
本文系统梳理了特定碳水化合物饮食(SCD)、低FODMAP、无麸质、无乳制品…这些限制性饮食常被用于应对不同的健康困扰,但它们带来的匹配获益,是否足以抵偿长期坚持所付出的营养、微生态、心理和现实成本?
本文不预设限制性饮食应当被推崇或否定,而是尝试追问:对谁有益、依据有多充分,又要付出什么代价?当明确依据有限时,我们应如何判断一种饮食限制是否值得长期坚持?
编辑
限制性饮食之所以有吸引力,很大程度上来自一个符合直觉的推理:既然某些食物可能带来症状,把它们排除以后感觉舒服了一些,那么意味着排除得更加彻底,也许效果会更好。
特定碳水化合物饮食(specific carbohydrate diet,SCD)是一个典型例子。
特定碳水化合物饮食 vs. 地中海饮食——限制更多的一方,没有明显优势
特定碳水化合物饮食(specific carbohydrate diet,SCD)是 IBD 患者中较常见的限制性饮食之一。通常限制谷物、复杂碳水化合物、多数乳制品和加工食品。
早期一些病例和观察性研究报告过症状改善,但样本量、随访时间和对照质量都有限。
编辑
2021 年,发表于《Gastroenterology》的一项DINE-CD 的多中心随机对照试验,给了研究者一个很直接的比较机会:SCD与地中海饮食,谁对轻中度症状的成年克罗恩病患者更有帮助?
研究纳入有轻中度症状的成年克罗恩病患者,194 人被随机分配到 SCD 或地中海饮食组,191 人进入有效性分析。前6 周由研究方提供符合方案的餐食和零食,之后患者自行执行饮食。
第 6 周,两组差异没有统计学意义。结果如下:
编辑
也就是说,在这组轻中度症状的成年人中,限制明显更多的SCD,并没有因为“管得更严”而获得更好的症状缓解或炎症指标应答。
无麸质、无乳制品——有适应证时有价值,长期坚持缺少依据
无麸质和无乳制品饮食也需要区分适应证。
如果 IBD 患者同时存在乳糜泻——严格无麸质饮食当然是必要治疗;
如果明确有乳糖不耐受——减少乳糖摄入也可能明显改善腹胀、腹泻等症状。
到了没有这些适应证的IBD患者身上,证据就弱得多。
目前没有高质量随机对照试验证明,没有乳糜泻的IBD患者通过长期戒除麸质可以改善炎症结局。无麸质饮食还可能降低膳食纤维、叶酸、维生素B12、维生素D、铁和钙等营养素的摄入,同时增加饮食成本。
乳制品也有类似情况
两项规模较小的UC维持期研究共纳入77名患者,12个月时,无奶饮食组临床复发率为59%,对照组为68%,RR=0.83,95%CI 0.60~1.15,差异没有达到统计学显著;内镜和组织学复发的数据也不足以支持明确结论。
与此同时,长期排除乳制品还需要考虑钙和维生素D不足。
因此,对于长期忌口的患者,可以定期问问自己:这项限制当初为什么开始,今天还需要吗?
当严格程度增加,却没有获得与之相匹配的疾病获益,长期越来越窄的饮食范围,会不会同时付出其他代价?
编辑
限制性饮食当然有它的临床位置。疾病活动期、存在梗阻风险、明确食物不耐受,饮食调整本身可以是治疗和症状管理的一部分。
需要权衡的是,当一种长期限制没有显示出与其严格程度相匹配的疾病获益时,那么营养、心理、微生态、成本和可执行性代价就应被重视。
营养代价 | 过度忌口,加重营养风险
IBD 患者本身就容易出现营养问题。慢性炎症、食欲下降、腹泻和吸收障碍,都可能影响营养摄入和吸收,药物及既往手术也可能增加这一风险。
如果此时又长期排除多个食物类别,问题就容易叠加。长期忌口、食物种类不断减少,则可能进一步造成能量和蛋白质摄入不足,铁、维生素 B12、叶酸、维生素 D、锌和钙等营养素缺乏的风险增加。
看似正常的体重,也可能出现营养问题
即使体重没有明显下降,患者仍可能出现肌肉量减少,甚至发展为肌少症。研究指出,IBD 患者的肌少症与住院、术后并发症、生物制剂治疗反应较差及生活质量下降有关。
编辑
对于儿童和青少年,具有更高的营养需求,营养不足还可能影响生长发育、青春期发育延迟、骨矿化不足等。
因此,饮食管理里不是说只盯着“这顿饭有没有让我拉肚子”,也要看长期能量、蛋白质和微量营养素有没有跟上。
AGA 2024年临床实践更新提出,IBD患者需要定期接受营养不良筛查,并关注维生素D和铁;对于广泛回肠病变或既往回肠手术患者,还应特别关注维生素B12。
微生态代价 | 过度忌口,可能改变肠道菌群
长期限制还有一个容易被忽视的矛盾:很多人减少食物种类,是为了保护肠道,但肠道微生物同样依赖我们每天吃进去的食物。全谷物、豆类、蔬菜、水果中的多种膳食纤维和可发酵成分,可被肠道微生物利用,并生成包括乙酸、丙酸、丁酸在内的短链脂肪酸。丁酸被认为参与肠上皮屏障完整性和免疫调节。
研究指出,饮食多样性与肠道微生物群的多样性和韧性有关;长期减少可发酵纤维,可能伴随部分有益菌减少和短链脂肪酸生成下降。
因此,食物越来越单一带来的变化,可能不只表现为少摄入了几种维生素。长期饮食结构怎样改变肠道生态,也逐渐成为IBD营养研究的重要方向。
心理代价 | 焦虑:从谨慎进食到害怕吃饭
当食物不断被分成安全和危险,正常进食很容易变成持续的风险评估。
今天腹痛,就开始回想中午是不是吃错了什么;
明天排便次数增加,又从菜单里删掉一样。
随着这种模式不断重复,可选择的食物越来越少,
即使疾病已经稳定,患者也可能仍然不敢尝试过去停掉的食物。
这种模式在部分患者中会发展为明显的食物焦虑,甚至达到回避/限制性食物摄入障碍(avoidant/restrictive food intake disorder,ARFID)的标准。
注:回避/限制性食物摄入障碍是一种进食障碍。患者可能因为害怕进食后的不良反应、对食物的气味或质地敏感,或者缺乏进食兴趣,长期回避某些食物或限制摄入量,进而出现营养不足、体重下降或社交功能受损。与神经性厌食症不同,ARFID 通常与追求瘦身或对体重、体形的不满无关。
2025 年一项多中心研究纳入 325 名 IBD 患者,17.8% 符合 ARFID 标准;
即便只看没有客观活动性炎症的患者,仍有 16.3% 符合标准。
对于这部分疾病处于非活动状态的患者,胃肠道相关焦虑是显著预测因素。
一项包括国内四家三甲医院的消化内科门诊进行的横断面研究,共有 483 名患有炎症性肠病的患者完成了问卷调查。其中,20.3%的患者符合急性回避障碍的临床标准。急性回避障碍的平均得分为 21.9 分。
编辑
多变量逻辑回归分析结果显示,以下因素与急性回避障碍的发生有显著关联:患有克罗恩病的患者(比值比为 0.483,95%置信区间:0.280-0.835;p=0.009);处于活动性疾病状态的患者(比值比为 0.220,95%置信区间:0.123-0.392;p<0.001);具有与症状控制相关的饮食观念的患者(比值比为 2.431,95%置信区间:1.299-4.548;p=0.005);以及有特定饮食史的患者(比值比为 27.158,95%置信区间:3.679-200.456;p=0.001)。
回避/限制性食物摄入障碍(ARFID)不是以减重为目的的节食
患者可能因为害怕腹痛、腹泻等进食后果,对食物气味或质地敏感,或者逐渐缺乏进食兴趣,持续回避食物或限制摄入,最后影响营养、体重和社会功能。
当限制不断扩大、即使病情稳定也不敢重新引入食物时,饮食管理已经不仅是营养问题,也可能成为心理和生活质量问题。
执行代价 | 方案越复杂,现实中的坚持越困难
严格饮食还会带来很实际的负担:购买特殊食材、阅读配料表、自己准备餐食、减少外食、额外使用营养补充剂,以及更多的时间和经济成本。
临床试验中的退出率,可以部分反映这种负担。
提供预制餐 V.S. 自行备餐
提供预制餐:2026年一项对62项IBD饮食试验、共3523名参与者进行的Meta研究显示,总体未完成率约为16%。
自行备餐:其中最显著的例子是 PRODUCE 试验,在该试验中,特定碳水化合物饮食组44%的参与者退出。
编辑
研究者还注意到,由研究团队直接提供餐食的试验,完成情况往往好于需要参与者自行采购和准备食物的试验。换句话说,进入真实生活以后,复杂饮食的执行难度可能还会进一步增加。
当这些问题被放到一起,IBD长期饮食管理的方向也开始发生变化。
编辑
如果长期饮食限制既没有稳定显示出更好的疾病控制,又可能伴随营养、微生态、心理和执行方面的成本,那么研究自然会开始寻找另一种路径:在疾病条件允许的情况下,尽量保留更完整、更丰富、更容易长期维持的饮食结构。
近年来被讨论较多的地中海饮食,就是这种思路的代表之一。
地中海饮食:一种更丰富的长期饮食框架
地中海饮食强调摄入蔬菜、水果、全谷物、豆类、坚果、橄榄油、鱼类及其他优质蛋白,同时减少红肉、加工肉类和超加工食品。
这种饮食模式的特点不在某一种超级食物,而在整体组合:包含较丰富的膳食纤维、不饱和脂肪酸及植物来源的生物活性成分,也为肠道微生物提供了多种可利用的膳食底物。
编辑
在针对 IBD 研究过的包容性饮食模式中,当前各学会推荐地中海饮食作为大多数患者优选的饮食框架。
不过,支持性证据主要来自观察性研究,而随机对照试验数据仍然有限。
一些研究已经证明,坚持地中海饮食与克罗恩病和溃疡性结肠炎患者的疾病活动指数、炎症生物标志物和生活质量改善之间存在关联。
前文介绍的 DINE-CD 试验,也为这一方向提供了参考。在具有轻中度症状的成年克罗恩病患者中,地中海饮食与限制更严格的 SCD 在第6周取得了相近的症状缓解率,两组的炎症指标应答率也未见显著差异。
这项研究提示,长期饮食方案的选择可以同时考虑营养结构、食物丰富程度及患者的执行能力。对于病情稳定、没有特殊饮食禁忌的患者,地中海饮食提供了一种较容易融入日常生活的基础框架。
相关研究为包容性饮食提供了生物学依据,长期疾病获益仍有待更多临床试验进一步明确。
专业指南更加重视营养充分与长期可持续
近年来,专业组织相继更新 IBD 饮食管理建议,将营养状态、疾病活动度及患者的实际生活需求纳入饮食方案的选择。
各组织的关注重点有所不同,但整体上都强调营养充分、个体化管理,以及饮食干预与规范医学治疗相结合。
中华医学会消化病学分会
2026年,《中华医学会消化病学分会炎症性肠病学组》发布了《炎症性肠病生活方式管理中国专家共识》。
1、IBD患者普遍存在膳食纤维、维生素、矿物质及其他营养素摄入不足的问题,导致营养缺乏发生率较高。多种营养素缺乏与疾病活动度密切相关。患者应在医师指导下加强饮食管理并适时补充必需营养素。(共识水平:100.0%;证据质量:中等质量)
2、饮食或补充剂中增加膳食纤维对非狭窄型克罗恩病患者具有良好安全性,而合并症状性肠道狭窄的克罗恩病患者应严格限制膳食纤维的摄入。(共识水平:96.0%;证据质量:中等质量)
3、在充分保障患者每日营养需求的前提下,临床医师应结合IBD患者的肠道耐受情况,参考一般人群的健康膳食指南,对脂肪、蛋白质,以及特定种类的肉类、蔬菜和水果的摄入进行个体化调整,以实现营养均衡和症状控制的双重目标。
4、超加工食品的摄入可能增加IBD患者的疾病活动度和复发风险,并与手术等不良结局相关,建议患者在日常生活中减少此类食品的摄入。(共识水平:100.0%;证据质量:中等质量)
5、鉴于我国人群乳糖不耐受比例较高,建议对乳制品不耐受或回避的IBD患者增加其他来源的蛋白质和营养素摄入,以保证其营养需求。
6、不建议IBD患者在无明确依据的情况下减少米、面等精制谷物主食的摄入。如有调整饮食结构的需求,可在专业人士指导下适度增加全谷物的摄入。
7、以高摄入超加工食品、红肉和动物脂肪,以及低摄入蔬菜与水果为特征的西方化饮食与IBD患者的不良预后密切相关。在日常饮食管理中,患者可参考地中海饮食(高蔬菜水果、全谷物、豆类、鱼类及不饱和脂肪摄入,限制红肉和甜食摄入),含可被发酵的低聚糖、双糖、单糖和多聚糖的食物(fermentableoligosaccharides, dissaccharides,monosaccharides andpolyol;FODMAP)饮食,以及江南饮食等健康饮食模式进行食物选择。这些健康饮食模式的共同理念在于增加水果、蔬菜、全谷物、豆类、鱼类、坚果与种子类食物的摄入,同时限制红肉、加工肉类、高糖食品和饮料的摄入。(共识水平:92.0%;证据质量:高质量)
——以上内容引自:《中华医学会消化病学分会炎症性肠病学组》
国外权威指南也有相关描述:
美国胃肠病协会 (AGA)
2024年临床实践更新建议,在没有禁忌的情况下,多数 IBD 患者可以将地中海饮食作为长期健康饮食的基础。
对于症状明显的疾病活动期患者,可以短期采用低渣、低纤维饮食,并根据病情逐步恢复日常饮食。AGA 对长期严格限制性饮食持谨慎态度,包括长期维持低 FODMAP 饮食。
此外,减少红肉和加工肉类摄入可能有助于降低溃疡性结肠炎的发作风险,但在克罗恩病中尚未观察到同样明确的复发预防效果。
欧洲克罗恩病和结肠炎组织 (ECCO)
2025年饮食管理共识强调保障充足的营养摄入,避免缺乏明确适应证的长期限制。对于活动期或存在肠梗阻症状的患者,可以根据临床情况短期调整饮食。
ECCO 还建议尽早引入具备 IBD 管理经验的营养师,协助评估营养状态、制定个体化方案,并提高长期饮食管理的可执行性。
国际炎症性肠病研究组织 (IOIBD)
IOIBD承认,饮食干预可能在症状管理中发挥作用,或作为部分患者的辅助治疗,但不要将限制性饮食作为单一治疗方案。该组织特别强调在进行饮食干预时,要进行共同决策、密切监测营养缺乏症,并让多学科护理团队参与。
美国胃肠病学会 (ACG)
对克罗恩病和溃疡性结肠炎的相关建议也强调饮食的辅助作用。对于中重度活动性 IBD,疾病控制仍需要有效的药物治疗;部分轻症患者或有特定症状的患者,可以在专业指导下进行短期饮食调整,并获得相应的营养支持。
编辑
doi.org/10.1007/s11894-026-01047-0
综合这些建议,长期饮食管理更加重视营养充分、饮食多样性和患者的实际耐受情况。地中海饮食因其整体健康获益、食物选择相对丰富及长期可执行性,成为多数 IBD 患者可以考虑的基础饮食模式。
对于有明确临床需要的患者,针对性限制和治疗性饮食仍然具有相应的应用价值。
全肠内营养、克罗恩病排除饮食:限制可以有价值,但要有目标、有阶段
EEN:在克罗恩病中具有明确治疗地位,儿童证据尤其充分
全肠内营养(Exclusive Enteral Nutrition,EEN)在克罗恩病,尤其儿童克罗恩病中具有明确治疗地位。在规定疗程内,患者主要通过营养配方获得完整营养,以缓解疾病。
部分成年患者也可在专业指导下采用 EEN,具体应用需要结合疾病状态、营养情况及治疗目标。
CDED:“限制”也可以是结构化、阶段性的治疗
克罗恩病排除饮食(Crohn’s Disease Exclusion Diet,CDED)是一种分阶段实施的治疗性饮食,通常与部分肠内营养(Partial Enteral Nutrition,PEN)联合使用。
它并不是让患者无限期地排除越来越多食物,而是按照治疗目标规定不同阶段的饮食内容,并安排后续过渡。
2019年的一项随机对照试验纳入78名轻中度克罗恩病患儿。40人接受CDED联合PEN,38人接受EEN。CDED+PEN组的饮食耐受率达到97.5%,EEN组为73.6%,P=0.002。
第6周,采用更严格缓解标准时,两组无激素缓解率分别为75%和59%,差异没有达到统计学显著。
到了第12周,持续接受CDED+PEN的患者中75.6%维持无激素缓解,而EEN后转为自由饮食联合PEN的对照组为45.1%,P=0.01。
这类治疗性饮食有一个共同点:适应证、疗程和后续调整都比较明确,通常由医疗和营养专业人员共同管理。研究也强调,限制性饮食应有明确目标和时间边界,并安排结构化的食物重新引入。
限制要有开始,也要有退出机制。
这也给“动态扩容”划出了边界:病情需要时可以限制,条件改变后,就该重新评估那些曾经被停掉的食物。那么,什么时候可以加回来?吃完不舒服又该怎么看?
编辑
IBD 患者在不同疾病阶段的饮食需求存在明显差异。
同一种食物,对不同患者可能不同;对同一个患者,在活动期、缓解期、术后恢复期,答案也可能发生变化。有没有明显狭窄、一次吃多少、食物是生的还是充分煮熟、个人有没有乳糖或其他食物不耐受,都会影响实际反应。
因此,与其不断追问“这个东西到底能不能吃”,更有效的问题是:
以现在的疾病状态,这个食物是否适合?
如果需要暂缓,原因是什么?什么时候再评估?
吃完不舒服,需要重视,但不当成炎症复发
腹胀、腹痛、排便次数增多、大便变稀,当然都值得关注。但IBD中的胃肠道症状与炎症活动并不完全同步。
有些食物进入肠道以后,因为发酵、渗透作用、食物质地或对胃肠动力的影响,可以造成产气、腹胀和排便改变,这些症状并不意味着肠黏膜炎症必然同步加重。反过来,一个人几乎没有症状,也不能据此确认肠道中完全不存在炎症。
低FODMAP研究非常适合说明这个区别
低 FODMAP 饮食最初用于肠易激综合征,主要减少容易发酵、吸收不完全的短链碳水化合物。
它在 IBD 中最有价值的场景,通常是疾病处于缓解期,但患者仍然存在腹胀、腹痛、腹泻等 IBS 样症状。
编辑
2020 年一项随机对照试验纳入 52 名处于静止期、但仍有持续胃肠道症状的克罗恩病或溃疡性结肠炎患者。27 人接受低 FODMAP 饮食建议,25 人接受对照饮食建议,干预 4 周。低 FODMAP 组 14/27(52%)报告胃肠道症状得到充分缓解,对照组为 4/25(16%)(P=0.007)。
症状上的差异很明显,但研究并没有观察到相应的抗炎变化。粪便钙卫蛋白、CRP等指标没有出现一致改善。
2025年的Meta分析汇总5项随机对照试验、共224名患者,也发现低FODMAP可以降低整体IBS样症状严重程度,SMD=-0.56,95%CI -0.90~-0.23,P=0.0009;粪便钙卫蛋白则没有显著差异,SMD=-0.20,P=0.17,而且整体证据确定性仍然有限。
编辑
随机研究还观察到长期严格低FODMAP可能减少双歧杆菌和普拉梭菌,并影响丁酸生成。
因此,目前低FODMAP饮食更适合在有IBS样症状重叠的部分IBD患者中短期使用,随后进行结构化的食物再引入。
这组研究对普通患者有一个非常实际的意义:
有时候需要调整的是量,有时候是食物形态,有时候处理的是功能性症状;如果客观炎症指标同时升高,则又属于另外一个临床问题。
看现在处在哪个阶段,再决定要不要“扩”
开始重新引入食物以前,首先需要判断当前疾病状态。
活动性炎症、IBD与IBS样症状重叠、肠道狭窄以及术后恢复,对饮食的要求差异很大。评估时除了症状,还可以结合粪便钙卫蛋白、CRP,必要时通过内镜或肠道检查了解炎症和肠道结构。
如果炎症正在明显活动,治疗炎症本身仍然是疾病管理的核心,不能因为少吃几样东西以后腹泻减少,就认为疾病已经得到控制。
如果炎症处于稳定状态,却仍有明显腹胀、腹痛和排便异常,就可以考虑是否存在IBS样功能性症状,以及低FODMAP等短期干预是否适合。
如果存在明显肠道狭窄或梗阻风险,食物质地和纤维摄入又需要单独调整。即使从长期健康角度希望增加植物性食物,也不能脱离肠道结构情况自行大量增加粗纤维。
编辑
重新引入时,一次不要改变太多
当疾病稳定、营养状态允许、又没有明确禁忌时,可以逐步尝试一些过去停掉的食物。
如果一次恢复五六种食物,第二天出现腹胀,很难知道真正的影响因素在哪里。因此,更容易观察的方法是一次尽量改变一个主要变量,从相对小的量开始,再结合食物质地和烹调方式逐步调整。
例如,一种蔬菜过去生吃容易出现明显症状,可以根据个人情况先从充分煮熟、较小份量尝试;曾经长期不吃豆类,也无需第一顿就吃很大的量。
如存在明显狭窄、既往复杂手术或其他特殊情况时,重新增加膳食纤维尤其需要医生和营养专业人员参与。
这个过程不追求“挑战食物”。主要是看这项限制今天还需不需要存在?如果不需要,我怎样把它稳妥地放回日常饮食?
观察症状、炎症、营养和微生态
重新吃回一种食物时,最容易感知的是腹胀、腹痛、排便这些变化,这些都可以记录下来。
但如果要判断这次重新引入是否合适,还需要把观察范围放宽一些,时间拉长一点。看这种反应是否反复出现,以及经过一段时间后,炎症状态、营养状态等有没有一起变化。
比如,某种食物增加以后连续几次都出现类似的腹胀,可以进一步调整摄入量、烹调方式或食物形态;
如果只是偶尔一次不舒服,之后又能够正常耐受,就没有必要急着重新把它放回“黑名单”。
——看疾病状态
除了症状记录,也可以结合粪便钙卫蛋白、C反应蛋白等炎症相关指标;医生认为有必要时,再进一步考虑内镜或影像检查。这些临床评估仍是判断疾病活动度的重要依据。
如果希望进一步了解肠道微生态,也可以把粪便菌群检测作为补充观察工具。以谷禾健康肠道菌群检测为例,样本通过粪便采集,过程相对无创;报告可提供菌群组成,以及与炎症、肠道屏障等相关的参考指标和风险评估,为理解个体的微生态状况增加指导线索。
把这些信息放在一起,更容易判断这段时间出现的腹泻、腹痛,究竟是食物耐受变化,还是疾病状态也在悄悄发生改变。
——看营养和饮食结构
除了症状和炎症相关指标,体重、肌肉量,以及铁、维生素D、维生素B12等营养指标,也值得持续关注。它们能帮助判断:随着饮食限制减少,营养摄入是否更充足,整体饮食结构是否有所改善。
编辑
例如,一位长期不吃豆类、全谷物和多种蔬菜的患者,在病情稳定后逐步增加这些食物,观察的就不只是“吃完有没有腹胀”。还可以结合粪便钙卫蛋白、C反应蛋白等临床指标,关注炎症状态是否稳定。
同时评估膳食纤维摄入和相关营养指标的变化。如果希望进一步了解饮食调整伴随的微生态变化,也可以参考菌群多样性、短链脂肪酸相关评估及相关菌群等指标。
这些信息需要放在一起理解:饮食变化、症状、营养状态、近期用药和疾病活动度都可能影响肠道微生态。菌群检测可以补充一组个体化的微生态参考信息,帮助患者和医生观察饮食结构变化与菌群特征之间是否出现值得关注的趋势。
编辑
饮食调整开始时,可以先留下自己的基线菌群状态。几个月后再复测,与自己的基线做纵向比较,就能看到随着食物种类逐步增加,菌群多样性、核心菌群、IBD风险评估,以及膳食纤维、短链脂肪酸生成能力等指标在发生的变化,通过这样不断持续记录和对比,不仅能清晰地看到哪些饮食调整对自己的菌群产生了积极影响,更能发现哪些食物可能引发了肠道不适,从而灵活地进行针对性地调整。
编辑
对于炎症性肠病(IBD)患者,限制饮食有明确适用场景,例如确诊乳糜泻、食物过敏,或在专业指导下进行有期限、有目标的饮食干预。需要重新审视的,是那些长期沿用、依据不清,或已经让饮食种类越来越少、营养摄入和生活质量受到影响的限制。“可能不耐受”不等于必须终身忌口;但重新尝试,也应建立在病情和个人风险经过评估的基础上。
如果考虑重新引入某种食物,第一步不是直接试吃,而是先弄清楚限制它的原因:曾经出现的是过敏反应、稳定重复的胃肠道症状,还是在疾病发作期偶然出现的不适?目前疾病是否稳定?是否有肠道狭窄、梗阻风险、吞咽困难等会影响进食安全的情况?既往是否有严重过敏反应?同时也要盘点体重变化、实际摄入量,以及铁、维生素B12、维生素D等营养风险。
若有狭窄或梗阻风险、严重过敏史、明显营养不良或病情活动,不宜自行进行食物挑战。
有一个比较安全可以采用一个简单、可复盘的步骤:一次只调整一种食物,从少量、容易控制的形式开始;尽量保持其他饮食和用药不变;记录食物、份量、烹调方式、症状及发生时间。若相似反应在多次摄入后重复出现,再讨论是否需要改变份量或做法、暂缓尝试,或进一步评估。若只是偶发一次不适,不必立刻把食物永久列入禁忌(除一些诱发荨麻疹、呼吸困难、喉头肿胀等严重过敏反应的食物)。
判断结果时,也不要把所有症状都归因于食物。腹痛、腹泻可能与食物耐受、感染、药物或IBD活动等多种因素有关。若症状持续或加重,应由医生结合病程和具体表现,决定是否需要粪便钙卫蛋白、血液检查、内镜和肠道菌群评估;食物过敏评估则应基于相应的病史和临床怀疑,而不是仅凭不适就进行广泛筛查。与此同时,定期关注体重、肌肉量、饮食摄入和有指征的营养指标,避免在控制症状的过程中忽略营养不足和菌群的平衡以及多样性等。
注:本文仅用于IBD和营养相关知识分享,不替代针对个体患者的医疗和营养建议。IBD活动期、肠道狭窄、术后、儿童青少年及存在明显营养不良风险的人群,饮食调整尤其需要结合消化科医生及专业营养师进行个体化评估。
相关阅读:
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
炎症性肠病中宿主与微生物群的相互作用
“灭火指南”——通过早期营养干预改善慢性低度炎症
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
肠道病原体感染定植的三个关键角色——炎症、营养与共生菌群
肠道菌群失调与炎症性肠病的关联
全面解析各类营养物质在炎症中的作用
主要参考文献
向上滑动阅览
Cunha B, Alter A, Berschback M, Park S, Gold S, Schneider Y. Rethinking Restrictive Diets in IBD: Toward an Inclusion-Focused Nutritional Paradigm. Curr Gastroenterol Rep. 2026 Sep 19;28(1):31.
Hashash JG, Elkins J, Lewis JD, Binion DG. AGA Clinical Practice Update on Diet and Nutritional Therapies in Patients With Inflammatory Bowel Disease: Expert Review. Gastroenterology. 2024 Mar;166(3):521-532.
Tu W, Li Y, Yin T, Zhang S, Zhang P, Xu G. Association between avoidant/restrictive food intake disorder risk, dietary attitudes and behaviors among Chinese patients with inflammatory bowel disease: a cross-sectional study. BMC Gastroenterol. 2025 Mar 6;25(1):144.
Godny L, Pfeffer-Gik T, Elial-Fatal S, Shakhman S, Dotan I. Nutritional composition of diets for inducing and maintaining remission in inflammatory bowel diseases: from bedside to plate. Curr Opin Pharmacol. 2026 Feb;86:102587.
Ville A, McRae R, Nomchong J, Reidlinger DP, Davidson AR, Staudacher HM, Albarqouni L. Effects of a Low FODMAP Diet in Inflammatory Bowel Disease and Patient Experiences: A Mixed Methods Systematic Literature Review and Meta-Analysis. J Hum Nutr Diet. 2025 Aug;38(4):e70106.
Gregersen L, Moos C, Hikmat Z, Fogh Rasmussen N, Petersen SR, Heitmann BL, Halldórsson ÞI, Andersen V, Christensen R. Study Design Complexity and Participant Completion in Dietary Trials for Inflammatory Bowel Disease: A Systematic Review and Metaresearch Study. Adv Nutr. 2026 Apr;17(4):100614.
谷禾健康
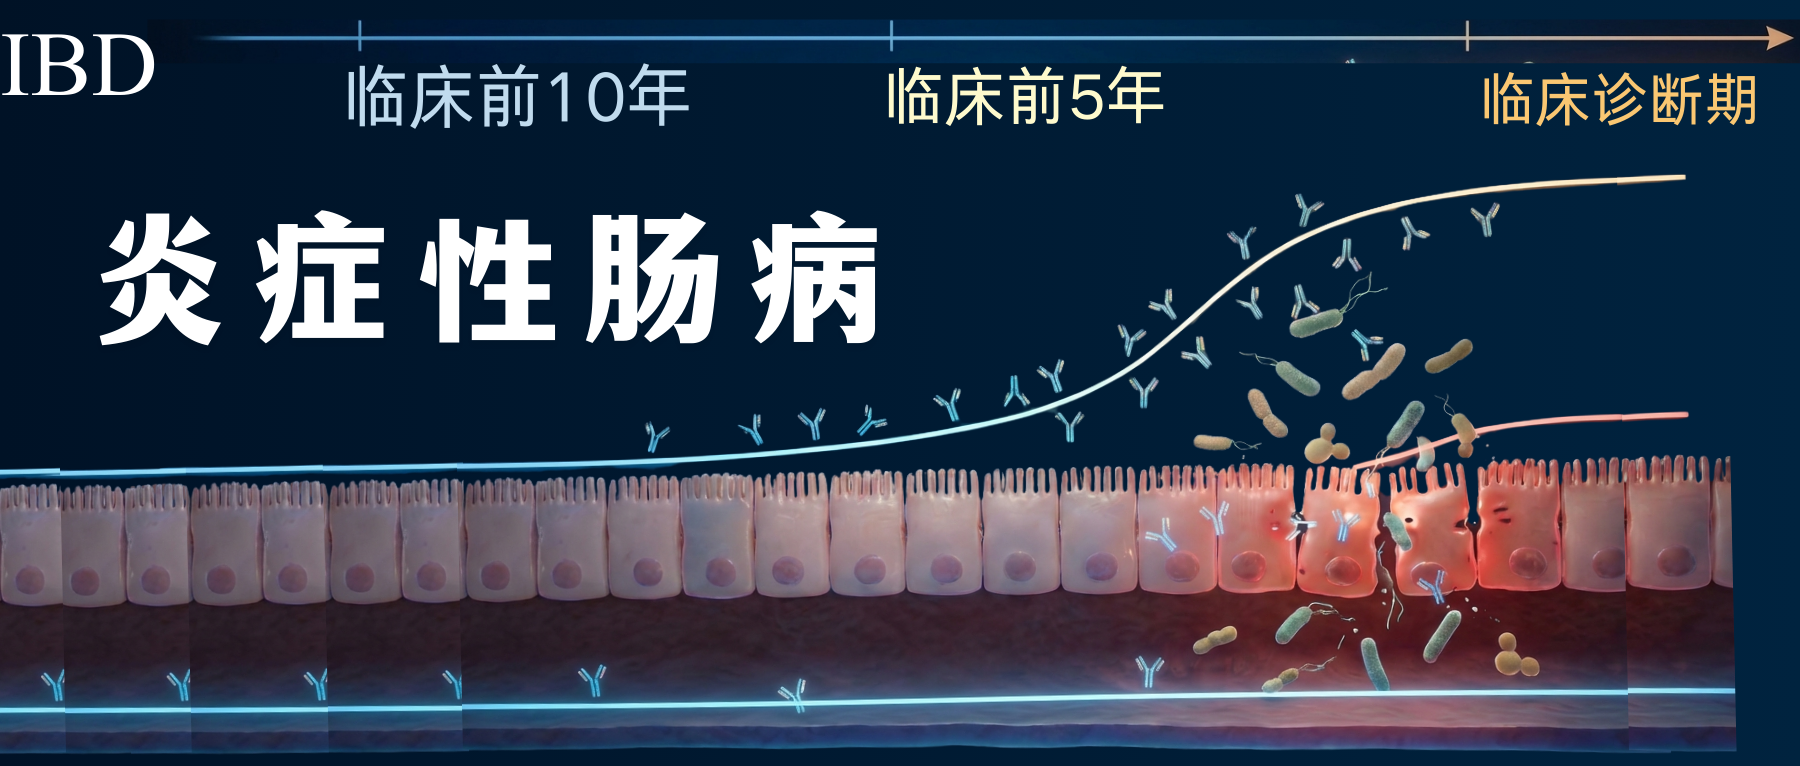
炎症性肠病(Inflammatory Bowel Disease, IBD)是一种复杂的、多因素驱动的慢性胃肠道炎症性疾病,研究显示其发病率在全球范围内持续上升。
研究表明,IBD的病因涉及遗传易感性、环境因素、肠道微生物动态变化以及宿主免疫调控的复杂相互作用。近年来,随着多组学技术和临床研究的深入,科学界对IBD在临床前阶段有了更深刻的认知框架。
前瞻性队列研究证实,基于高风险人群的纵向队列数据揭示,在临床确诊前5-10年,个体已呈现特征性的亚临床病理改变:肠道屏障功能渐进性损伤、微生物生态结构失衡、抗微生物抗体谱系异常,糖基化修饰的系统性改变等。比如,粪便钙卫蛋白等生物标志物的动态变化模式,为追踪疾病自然史提供了可量化的监测指标。
当这些亚临床病理改变突破代偿阈值,便表现为典型的IBD临床症状。
本文依据现有研究资料,系统性地阐述了IBD的定义、分类、流行病学特征、多重危险因素,重点剖析了临床前IBD的启动与发展阶段,涵盖肠道屏障功能、微生物生态、宿主免疫应答、蛋白质组学及糖基化修饰等多个层面的动态变化;在此基础上,我们还将探讨当前靶向菌群的干预策略与未来预防医学新范式,为IBD的早期识别与精准管理提供理论依据。
目 录
1. 炎症性肠病(IBD)概述
2. IBD的危险因素与决定因素
3. 临床前IBD:从启动到扩展
4. IBD综合发展模型方向
5. 治疗措施与预防机会
6. 结论与展望
IBD的定义与主要形式
炎症性肠病(IBD)是一组以胃肠道慢性、复发性炎症为特征的免疫介导的疾病。
其主要包括两种类型:
病变部位和病理特征
克罗恩病的炎症可累及从口腔到肛门的整个消化道,呈节段性、非对称性分布,炎症可穿透肠壁全层,导致狭窄、穿透(瘘管)等并发症。
溃疡性结肠炎的炎症通常局限于结肠黏膜和黏膜下层,自直肠开始呈连续性、弥漫性向近端蔓延。
尽管两者在病变部位和病理特征上有所区别,但它们共同的病理生理基础是宿主对肠道微生物群产生异常且持续的免疫反应,最终导致组织损伤。
肠道免疫系统在稳态和炎症状态下显著差异
在健康状态下(稳态),肠道上皮细胞形成完整的物理屏障,潘氏细胞(Paneth cell)分泌抗菌肽,杯状细胞(Goblet cell)分泌黏液,共同抵御微生物入侵。固有层中的免疫细胞,如调节性T细胞(Treg)和分泌IgA的浆细胞,共同维持对共生菌的免疫耐受(如下图 左边)。
编辑
doi.org/10.1038/s41590-025-02197-5
在IBD炎症状态下,这种平衡被打破。肠道屏障受损,潘氏细胞和杯状细胞功能下降,导致抗菌物质和黏液减少。
病原菌如克雷伯菌属(Klebsiella)增殖,共生有益菌菌(如普拉梭菌 F. prausnitzii)减少。大量炎症细胞(如TH1/TH2/TH17细胞、炎症性巨噬细胞)浸润肠道组织,分泌促炎细胞因子,并产生IgG抗体,导致慢性炎症和组织破坏(如上图右边)。
流行病学趋势
历史上,IBD主要被认为是西方工业化国家的疾病。然而,进入21世纪,IBD的全球发病率和患病率呈现出显著的上升趋势,尤其是在亚洲、南美和东欧等新兴工业化国家和地区,IBD已成为一个全球性的健康挑战。这种流行病学转变清晰地表明,除了遗传背景外,与工业化和城市化相关的生活方式、饮食结构和环境暴露等因素在IBD的发病中扮演着至关重要的角色。
针对不同种族和移民群体的研究也发现,IBD的临床表现、遗传易感性和治疗反应存在差异,这进一步凸显了基因-环境相互作用在IBD发病中的复杂性。
IBD的病因是多因素的,涉及遗传、环境、免疫和微生物等多个层面。这些因素相互交织,共同决定了个体患病的风险和疾病的表型。
遗 传 易 感 性
IBD具有明显的家族聚集性,遗传因素在其发病中起着基础性作用。单卵双生子研究显示,克罗恩病的一致性高达50%。通过全基因组关联研究(GWAS),目前已发现超过300个与IBD相关的易感基因位点。这些基因大多与免疫功能相关,特别是那些调节宿主与微生物相互作用的通路。例如:
值得注意的是,大多数遗传位点仅赋予个体一定概率的疾病风险,这也表明IBD是一种多基因疾病,其发病需要遗传与环境因素的共同作用。此外,不同种族人群的遗传背景差异也导致了IBD易感基因频率和效应的不同。
环 境 因 素
环境因素被认为是近年来IBD发病率快速上升的主要驱动力。这些因素在生命早期和成年期均可发挥作用,深刻影响肠道微生态和免疫系统的发育与功能。
✦ 饮食
西式饮食,即高脂肪、高糖、高加工食品和低纤维的饮食模式,被认为是IBD的重要风险因素。食品乳化剂(如羧甲基纤维素)会破坏肠道黏液屏障,改变微生物群组成,促进炎症。相反,富含纤维的饮食则有助于产生具有抗炎作用的短链脂肪酸(SCFAs)。
✦ 抗生素使用
尤其是在生命早期,抗生素的广泛使用会严重扰乱肠道微生物群的正常定植和发育,降低菌群多样性,增加IBD的长期风险。
✦ 感染
特定的肠道感染,如沙门氏菌、弯曲杆菌、诺如病毒,被发现与IBD的发病风险增加有关。这些感染可能作为“触发事件”,在遗传易感个体中打破免疫耐受。
✦ 吸烟
吸烟是影响IBD的明确环境因素之一。有趣的是,吸烟会增加克罗恩病的风险并加重其病情,但对溃疡性结肠炎却显示出一定的保护作用,其机制尚不完全清楚。
✦ 卫生假说
生命早期过度清洁的环境可能导致免疫系统未能充分接触微生物,从而发育不全,更易在日后对无害抗原产生过度反应。
✦ 其他因素
还包括空气污染、非甾体抗炎药(NSAIDs)的使用、社会经济地位以及心理压力等。
IBD的遗传和环境决定因素
编辑
doi.org/10.1038/s41590-025-02197-5
人群的免疫反应强度呈钟形分布。IBD可发生于免疫反应过弱(如NOD2缺陷导致对微生物抵抗力差)或过强(如IL-10调节缺陷导致对微生物耐受性差)的两个极端。
左下角的曼哈顿图代表遗传易感性,右下角的图标代表饮食、吸烟和微生物等环境因素。这些因素的相互作用决定了个体是否会滑向疾病的两端。
炎症反应的遗传与环境决定因素
个体的免疫反应强度存在连续的变异谱,从免疫缺陷到免疫超敏。IBD可以在这个谱系的两个极端发生。
编辑
◄ 免疫缺陷
一方面,某些遗传缺陷(如NOD2、ATG16L1功能丧失)会导致肠道先天免疫和屏障功能减弱,使宿主对微生物的抵抗力下降,易受机会性病原菌感染而引发炎症。
► 免疫超敏
另一方面,另一些遗传背景(如IL-10、IL-10R功能缺陷)则导致免疫调节功能受损,对正常的肠道共生菌产生过度的免疫反应,即免疫耐受丧失,从而引发炎症。
▲ 健康平衡
健康个体则处于两者之间的平衡状态,既能有效清除病原体,又能耐受共生菌。个体的遗传组成决定了其对特定环境暴露(如饮食、感染)的反应阈值和反应模式。
因此,IBD的发生是独特的遗传背景与特定环境因素相互作用(G×E)的结果,这也解释了为何暴露于相似环境中的人群只有少数遗传易感者会发病。
大量证据表明,IBD的临床诊断之前存在一个漫长的临床前阶段,在此期间,一系列病理生理变化已悄然发生。理解这一阶段是实现IBD早期预测和预防的关键。这一阶段可进一步细分为风险期、启动期和扩展期。
临床前IBD的分期模型
一个被广泛接受的模型将IBD的发展过程分为几个连续的阶段:
风险期
个体携带遗传易感基因,并可能在围产期、婴幼儿期及童年期暴露于某些环境风险因素(如抗生素、感染、母亲吸烟等)。这些因素共同启动了免疫系统的易感状态,但个体并无任何症状或病理改变。
临床前启动期
在某个未知的“触发事件”(如特定感染或饮食改变)后,疾病开始启动。这一阶段可持续多年(甚至在诊断前10年),其特征是出现亚临床的病理变化,如肠道通透性增加、微生物失调、以及针对微生物或自身抗原的低水平抗体应答。这些变化通常是无症状的。
临床前扩展期
在临床诊断前约2年,疾病进入扩展期。此时,病理变化加剧,全身性和肠道局部的炎症标志物(如CRP、粪便钙卫蛋白)显著升高,患者可能开始出现非特异性症状并开始出现要就诊的症状。这一阶段代表了从亚临床状态向临床显性疾病的过渡。
临床诊断期
当炎症累积到一定程度,导致明显的组织损伤和持续的临床症状(如腹痛、腹泻、便血)时,患者最终被诊断为IBD。
IBD临床前阶段的演变模型
编辑
doi:10.1038/s41575-023-00854-4.
IBD风险因素、发病途径和累积风险的时间演变
编辑
doi:10.1038/s41575-023-00854-4.
该图谱从生命阶段(怀孕至成年)的角度,展示了遗传风险和环境风险如何随时间累积。
在临床前阶段,微生物组扰动、屏障功能丧失、免疫功能障碍、代谢变化和糖基化改变等途径相互作用,共同推动IBD累积风险的增加,直至最终诊断。这也提示了不同生命阶段的预防干预窗口。
肠道屏障功能障碍与通透性改变
肠道屏障是维持肠道内环境稳态的第一道防线,其完整性在IBD发病中至关重要。
在临床前阶段,肠道屏障功能就已出现障碍。肠道屏障由物理屏障、化学屏障、生物屏障、免疫屏障构成。
☾ 物理屏障
由单层肠上皮细胞(IECs)及其间的紧密连接蛋白(如Claudin, Occludin)构成。
编辑
研究发现,在克罗恩病高风险亲属中,即使没有症状,其肠道通透性(以乳果糖/甘露醇比值LMR衡量)也显著增加,并且这种高通透性是未来发病的独立危险因素。
肌球蛋白轻链激酶(MLCK)的异常激活被认为是导致紧密连接开放、通透性增加的关键机制之一。
☾ 化学屏障
主要指覆盖在上皮表面的黏液层和由潘氏细胞分泌的抗菌肽(AMPs)。
编辑
黏液层由杯状细胞分泌的黏蛋白(主要是MUC2)构成,能有效隔离细菌与上皮细胞的直接接触。
在IBD中,黏液层变薄、不连续,其糖基化修饰也发生改变。同时,潘氏细胞功能受损,导致α-防御素等AMPs分泌减少,削弱了对微生物的控制能力。
☾ 生物屏障
编辑
肠道菌群中有益菌通过竞争营养、产生抑菌物质等方式抑制致病菌生长。另外通过产生短链脂肪酸,维持肠道酸性环境等。
☾ 免疫屏障
编辑
包括分泌型IgA(sIgA)和上皮内淋巴细胞(IELs)等。sIgA能中和并清除入侵的微生物,而在IBD中,针对特定病原菌的IgA反应可能不足或异常。
屏障功能的早期损害,使得肠腔内的微生物及其产物(如LPS)更容易易位至固有层,从而持续激活下方的免疫系统,启动炎症级联反应。
编辑
doi.org/10.1038/s41575-022-00604-y
肠道微生物群失调
肠道微生物失调是IBD的核心特征,既是疾病的结果,也可能是其驱动因素。在临床前阶段,微生物群的改变就已经出现。
✎ 菌群结构改变
IBD患者的肠道微生物多样性显著降低。
产短链脂肪酸菌,如普拉梭菌(Faecalibacterium prausnitzii)、罗氏菌属(Roseburia)等厚壁菌门细菌丰度减少。
而一些具有潜在致病性的需氧或兼性厌氧菌,如大肠杆菌(特别是黏附侵袭性大肠杆菌AIEC)、克雷伯菌属等变形杆菌门细菌,具核梭杆菌(Fusobacterium nucleatum)等则异常增殖。
✎ 真菌与病毒的改变
除了细菌,肠道真菌和病毒的失调也参与IBD。例如,白色念珠菌(Candida albicans)、马拉色菌(Malassezia)等真菌在IBD患者肠道中增多,某些高毒力菌株可通过分泌念珠菌溶血素(Candidalysin)等毒素加剧炎症。同时,噬菌体和某些肠道病毒的组成和丰度也发生改变。
编辑
doi.org/10.1038/s41579-025-01163-0
✎ 功能与代谢改变
微生物失调导致其功能和代谢产物的改变。丁酸等短链脂肪酸的产生减少,削弱了其对肠上皮细胞的营养支持和对免疫细胞的抗炎调节作用。相反,一些有害代谢物,如硫化氢、或诱导DNA损伤的吲哚胺类物质可能增多。胆汁酸的代谢也发生紊乱,影响了FXR、TGR5等核受体的信号,进而影响免疫调节。
这种失调的微生物群落,一方面无法提供维持肠道稳态所需的有益信号,另一方面其本身或其产物又成为持续刺激免疫系统的炎症来源。
编辑
doi.org/10.1038/s41579-025-01163-0
基因-微生物相互作用
特定的遗传背景与特定的微生物失调相结合,是驱动IBD发病的核心机制。研究表明,IBD相关的易感基因突变,往往导致宿主对特定微生物的反应异常。
NOD2与微生物
携带NOD2功能缺陷变异的个体,其肠道中脆弱拟杆菌(Bacteroides fragilis)等特定共生菌的调节能力下降,无法有效诱导Treg细胞,导致免疫耐受受损。
近期研究进一步揭示,粪肠球菌(Enterococcus faecium)分泌的DL-内肽酶SagA能够产生激活NOD2的信号分子MDP。在健康个体中,这一通路通过髓系细胞的NOD2激活,诱导IL-1β分泌,进而促进ILC3和CD4+ T细胞产生保护性的IL-22,促进组织修复。
然而,在IBD患者中,由于炎症环境中REG3等抗菌蛋白的过度产生,导致对REG3敏感的Efm被清除,从而使这一保护性通路中断。更重要的是,携带常见NOD2风险变异(如R702W)的个体,即使存在Efm,也无法有效启动这一保护性信号,导致炎症持续。这一发现为理解基因(NOD2变异)与微生物(Efm缺失或功能障碍)之间可能存在的相互作用机制提供了重要线索,提示它们在疾病发生与发展过程中潜在协同机制。
✨粪肠球菌
粪肠球菌在健康与IBD中的双重作用机制
编辑
doi.org/10.1016/j.chom.2023.08.002
健康状态下,粪肠球菌(E. faecium)通过其分泌的SagA激活髓系细胞的NOD2通路,最终诱导IL-22产生,促进组织再生和抑制炎症。
而在IBD中,一方面炎症环境产生的REG3蛋白会清除E. faecium;另一方面,NOD2的遗传变异会使该保护通路失效,导致炎症循环加剧。
ATG16L1与病毒
携带ATG16L1 T300A风险变异的小鼠,在感染鼠诺如病毒(MNV)后,其潘氏细胞会发生严重的细胞死亡和功能障碍,而野生型小鼠则不受影响。
这表明遗传易感性(ATG16L1变异)与环境触发(病毒感染)的结合,是导致特定细胞表型和病理变化的关键。
自身免疫与抗微生物体液应答
在IBD临床前阶段,体液免疫系统已经出现异常活化,表现为多种抗体水平的升高。这些抗体既可以靶向肠道微生物,也可以靶向宿主自身成分。
抗微生物抗体
在IBD诊断前数年,即可在患者血清中检测到针对肠道微生物成分的抗体。例如,抗酿酒酵母抗体(ASCA)是克罗恩病的经典标志物,其在诊断前5年甚至更早就已升高。
其他抗体还包括抗大肠杆菌外膜孔蛋白C(OmpC)抗体、抗鞭毛蛋白(CBir1, FlaX)抗体等。这些抗体的出现,反映了肠道屏障受损后,免疫系统与肠道微生物发生了异常的相互作用和免疫识别。
编辑
自身抗体
除了抗微生物抗体,一些自身抗体也在临床前阶段出现。例如,抗粒细胞-巨噬细胞集落刺激因子(GM-CSF)自身抗体在克罗恩病诊断前6年即可检出,并与更复杂的疾病表型相关。
部分研究提示,抗整合素αvβ6自身抗体在溃疡性结肠炎诊断前长达10年就已升高,并具有很高的预测价值。这些自身抗体的出现,标志着免疫系统打破了对自身组织的耐受,是疾病向自身免疫方向发展的重要证据。
蛋白质标志物的变化
利用高通量蛋白质组学技术,研究人员在IBD临床前患者的血清中鉴定出了一系列变化的蛋白质标志物。这些标志物反映了疾病早期潜在的病理过程。
◑ 炎症相关蛋白
在诊断前数年,全身性炎症标志物如C反应蛋白(CRP)和白细胞介素-6(IL-6)水平已轻度升高,提示存在潜在的炎症反应。
其他与炎症、免疫应答相关的蛋白,如肿瘤坏死因子受体(TNFR)、补体成分、脂多糖结合蛋白(LBP)等也发生改变。
◑ 趋化因子和细胞因子
趋化因子如CXCL9、CXCL11、CCL11在临床前阶段升高,这些分子与免疫细胞的招募和迁移有关,提示在临床症状出现前,免疫细胞的动态平衡可能已被打破。
◑ 组织重塑相关蛋白
基质金属蛋白酶(MMPs)如MMP10、MMP12等的水平变化,可能反映了疾病早期微小的组织损伤与修复过程。
这些蛋白质标志物的组合,有望构建预测模型,用于识别高风险人群,其预测准确性随着接近诊断时间点而提高。
糖基化修饰的改变
糖基化是蛋白质和脂质最常见和最复杂的翻译后修饰之一,形成的聚糖(Glycans)在细胞识别、信号转导、免疫调节中发挥关键作用。
在炎症性肠病(IBD)的发生和发展过程中,糖基化模式发生了显著变化。
N-聚糖和O-聚糖
聚糖主要分为N-连接聚糖(N-glycan)和O-连接聚糖(O-glycan)。
肠道不同部位的上皮细胞表达不同的O-聚糖核心结构,如结肠主要表达Core 3和Core 4。
常见的N-聚糖和O-聚糖结构
编辑
doi.org/10.1038/s41385-021-00466-8
该图展示了N-聚糖的核心与扩展形式(高甘露糖型、复杂型、混合型),以及O-聚糖的四种核心结构(Core 1-4)及其扩展形式。这些复杂的糖链结构是细胞功能的重要调节者。
炎症诱导的糖基化改变
在IBD的炎症黏膜中,一个普遍特征是出现不成熟或截短的聚糖结构。
例如,肿瘤相关的Thomsen-Friedenreich(TF)抗原(Galβ1-3GalNAc,即Core 1结构)在正常结肠中被掩盖,但在UC患者的炎症上皮中异常暴露。这种改变不仅影响细胞粘附,还可能通过与外源性凝集素(如花生凝集素PNA)结合,促进上皮细胞过度增殖,增加癌变风险。
编辑
关于凝集素可以详见我们之前的文章:
黏蛋白(Mucin)糖基化
MUC2是构成肠道黏液层的主要黏蛋白,其重度O-糖基化是维持黏液屏障功能的关键。
然而,在IBD中,MUC2的糖链变短,硫酸化水平降低,岩藻糖基化和唾液酸化模式也发生改变。这些改变削弱了黏液的保护功能,使其更容易被细菌降解,进而影响肠道的健康。
编辑
免疫细胞糖基化
免疫细胞的糖基化状态也影响其功能。例如,血清IgG的糖基化模式在IBD中发生改变,如半乳糖基化水平下降(agalactosylated IgG),这会改变其与Fc受体的亲和力,从而影响其促炎或抗炎功能。T细胞表面的聚糖分支(如β1-6分支)减少,会降低其激活阈值,使其更易被激活。
编辑
这些糖基化的改变,构成了IBD病理生理学中一个复杂但重要的层面,它们既是炎症的结果,也反过来驱动和维持炎症。
肠道稳态与炎症状态下的黏膜糖基化变化
编辑
doi.org/10.1038/s41385-021-00466-8
左图为稳态,具有完整的黏液层、正常的微生物群和成熟的细胞表面聚糖。
右图为炎症状态,黏液层降解,微生物失调,上皮细胞、免疫细胞和黏蛋白(Muc-2)的糖基化模式均发生显著改变,出现不成熟或异常的聚糖结构。
亚临床炎症
在IBD的临床前扩展期,一个关键特征是亚临床肠道炎症的出现。这可以通过非侵入性生物标志物——粪便钙卫蛋白(fecal calprotectin)的升高来检测。
钙卫蛋白是中性粒细胞释放的一种蛋白,其在粪便中的水平与肠道炎症程度密切相关。在克罗恩病高风险亲属中,基线粪便钙卫蛋白水平升高是未来发病的重要预测指标。
在这方面,谷禾肠道菌群检测报告(临床版)中基于肠道菌群特征预测了粪便钙卫蛋白这指标,若菌群检测提示有害菌过度增殖(如变形菌门)、有益菌减少(如双歧杆菌),且预测钙卫蛋白显著升高,常提示肠道可能存在活动性炎症(如 IBD、感染性肠炎)。
编辑
此外,一些高风险个体在接受胶囊内镜检查时,即使无任何症状,也可能发现小肠黏膜存在炎症性病变。这些亚临床炎症的存在,表明免疫系统的失调已经从分子和细胞水平进展到了组织层面,是疾病即将进入临床期的警报。
综合上述证据,可以构建一个多重组合的IBD发病模型。该模型强调,IBD并非由单一因素引起,而是遗传易感性与一系列环境“刺激”协同作用、累积效应的结果。
第一次刺激(遗传与早期环境)
个体出生时携带IBD易感基因(如NOD2、ATG16L1变异),这构成了发病的遗传基础。在生命早期,暴露于抗生素、不良饮食或特定感染等环境因素,导致肠道微生物群的早期定植异常和免疫系统的“错误编程”,使个体处于高风险状态。
第二次刺激(触发事件)
在随后的生命历程中,一次或多次环境经历,如特定的肠道感染(如诺如病毒)、饮食改变、药物使用或严重的心理压力,成为点燃炎症的“导火索”。这个触发事件在遗传易感个体中打破了原有的免疫稳态。
炎症的启动与自我维持
触发事件导致肠道屏障受损,微生物及其产物易位,激活了固有层的免疫细胞。在具有遗传缺陷的背景下(如NOD2信号通路受损),免疫系统无法进行有效的耐受或清除,而是产生持续的、过度的炎症反应。
例如,促炎细胞因子(TNF, IL-23)大量产生,而抗炎信号(IL-10, SCFAs)减弱。这种炎症环境本身又会进一步加剧微生物失调(如耗氧菌增殖)和屏障破坏(如上皮细胞死亡),形成一个“炎症-失调-屏障破坏”的恶性循环。
疾病的扩展与慢性化
随着时间的推移,这种自我维持的炎症循环导致免疫记忆的形成(如产生针对共生菌的致病性T细胞和IgG抗体)、组织重塑(如成纤维细胞活化导致纤维化)和淋巴结构破坏。当累积的损伤超过机体的代偿能力时,临床症状出现,疾病进入慢性、复发-缓解的病程。
在这个模型中,不同的基因-环境组合可能导致不同的疾病表型。例如,NOD2突变与特定细菌的相互作用可能主要导致小肠炎症,而ATG16L1突变与病毒感染的组合可能以潘氏细胞功能障碍为突出表现。这种异质性也解释了IBD患者在临床过程和治疗反应上的巨大差异(如下图)。
IBD的多重刺激疾病模型
编辑
doi.org/10.1038/s41590-025-02197-5
该图展示了从无疾病到临床前阶段再到晚期IBD的演变过程。遗传变异(如NOD2, ATG16L1)和环境因素(如感染、饮食)共同作用,在临床前阶段引发了微生物失调、免疫细胞活化(如IL-23/TNF产生)和早期上皮损伤。随着疾病进展,炎症加剧,大量免疫细胞浸润,肠道结构遭到严重破坏,形成晚期IBD。图中还标示了潜在的治疗干预靶点。
基于对IBD发病机制,特别是临床前阶段的深入理解,为开发新的治疗和预防策略可能提供了前所未有的机会。
当前治疗策略的挑战
目前的IBD治疗主要依赖于免疫抑制剂,包括糖皮质激素、免疫调节剂(如硫唑嘌呤)和生物制剂(如抗TNF、抗整合素、抗IL-12/23抗体)以及小分子药物(如JAK抑制剂)。这些药物通过抑制炎症反应来控制症状和促进黏膜愈合。但是这些治疗方法目前存在诸多局限:
–非特异性免疫抑制
大多数药物会全面抑制免疫系统,可能增加机会性感染和肿瘤的风险。
–原发性或继发性无应答
有相当一部分患者对初始治疗的疗效欠佳,或在治疗过程中疗效逐渐下降。
–症状缓解而非病因治疗
这些疗法主要通过控制炎症来改善临床症状,但对屏障功能缺陷、肠道菌群失调等根本病因的直接干预相对不足,停药后疾病容易复发。
–不良反应
长期用药可能引发多种药物相关的不良反应,需在临床实践中加强监测。
因此,开发更安全、更具针对性、能够实现无免疫抑制下长期缓解的疗法,是IBD领域的核心目标。
靶向肠道微生物的干预
鉴于微生物失调在IBD中的核心作用,靶向微生物的疗法成为研究热点。这些策略旨在恢复健康的肠道微生态,减少炎症刺激源。
靶向微生物组的干预策略
编辑
doi.org/10.1038/s41579-025-01163-0
微生物组分析可用于IBD的诊断前风险评估、诊断和预后预测。基于此,多种靶向微生物的干预措施正在被探索,包括饮食干预、益生菌、粪菌移植、限定细菌联盟、噬菌体疗法、真菌群调节以及更前沿的工程菌和酵母等。
🌈 饮食干预
特定饮食模式,如全肠内营养(Exclusive Enteral Nutrition, EEN),在儿童克罗恩病中显示出与激素相当的诱导缓解率,其机制可能与改变微生物组成和代谢、减轻肠道抗原负荷有关。
注:EEN 是一种液体单食谱疗法,要求患者在疗程期间完全排除所有固体食物和普通饮料,仅摄入特殊配方奶粉(或者说液体营养补充剂)作为唯一的营养来源。注意,它的蛋白质、脂肪、碳水化合物、维生素和矿物质均已科学配比,能够满足人体全部营养需求。切勿将其误解为普通的“清肠”或“断食”饮食。
—全肠内营养(研究最多的饮食干预措施之一)
全肠内营养(EEN),即在约8周内仅摄入营养完整的液体。EEN在儿童克罗恩病(CD)患者中显示出疗效,约80%的患者在这种饮食后进入缓解期。
目前尚不清楚EEN如何改善IBD症状,但有证据表明它会引起微生物组的变化,多项研究显示EEN饮食下微生物组的多样性降低。尽管微生物组多样性的减少通常与炎症状态相关,但在接受EEN的患者中,这种多样性的减少通常归因于EEN饮食成分的有限性。
对接受EEN饮食的儿童CD患者的粪便微生物组和代谢组分析发现,响应治疗的患者的两者均发生了变化:观察到与IBD发病机制相关的代谢物(包括微生物代谢物尸胺和三甲胺)减少,以及先前升高的氨基酸(丝氨酸、甘氨酸、丙氨酸)水平降低。
降低动物蛋白与动物脂肪摄入:研究表明,动物蛋白会促进肠道致病菌的生长,加重结肠炎。
个体化饮食:由于肠道菌群高度个体化,可通过肠道菌群检测制定更适合精准的饮食方案。
注意:虽然饮食干预是安全的辅助治疗手段,但对于活动期严重的 IBD 患者,饮食调整不建议替代药物治疗。应在专业医生或营养师的指导下进行,并定期监测体重、肠道菌群和营养状态。
编辑
注:现行美国胃肠病学会(AGA)指南指出,除非存在禁忌情况,否则所有IBD患者都可能从地中海饮食中受益。
—关注高发酵食品
一项临床试验比较了高纤维植物性饮食与高发酵食品饮食在健康成年人中的效果:吃发酵食品的个体具有更高的微生物多样性,同时伴随几种炎症标志物(包括IL-6、IL-10和IL-12b)的减少;而高纤维饮食组的微生物多样性保持稳定,微生物组编码的糖苷酶活性酶增加,特定短链脂肪酸亚群减少。
这些发现表明,特定的饮食干预(特别是增加发酵食品的摄入)可以改变微生物组的组成并减少肠道炎症。
这些例子强调了前临床模型在研究膳食添加剂的效果时的重要性,特别是在不同情况下的影响,以及在进行人体干预时考虑特定疾病状态的必要性。因此,这些方法应该被纳入临床研究中。
结合IBD的疼痛机制的营养饮食计划
为炎症性肠病患者制定饮食计划需要综合考虑疼痛机制、营养需求和个体差异。
-核心饮食模式
地中海饮食作为基础,采用高纤维、低饱和脂肪的饮食结构,富含坚果、油性鱼、水果、蔬菜和全谷物。
减少含添加剂、高盐、高糖和高饱和脂肪的食品,研究显示西方饮食模式通过增加氧化应激和免疫激活,加剧疼痛感知。
-个体化饮食调整(根据疼痛类型调整)
伤害性疼痛:活动期避免高纤维食物、坚果、种子和豆类;采用软食或流质饮食减少肠道机械刺激。
神经病理性疼痛:重点补充维生素B12、铜、锌等微量营养素,特别是术后患者。
中枢敏化性疼痛:增加富含抗氧化剂的食物,减少促炎食物,考虑肠-脑轴调节。
-关键营养干预
——维生素B12管理
高风险人群,比如回肠切除患者即使血清水平正常也应考虑补充。
缺乏者每周1000μg注射4周后每月维持,或口服1000-2000μg/天,改善神经性疼痛、疲劳,预防多维生素缺乏。
——维生素D
常规筛查和补充,改善骨健康和免疫调节。
——锌和铜
短肠综合征或长期腹泻患者特别需要关注
锌:慢性腹泻患者每日25-50mg,长期补充需同时补铜1-2mg
铜:减肥手术或短肠患者每日2-4mg,监测神经功能
——肉碱与能量支持
适用:慢性疲劳、神经性疼痛患者。
L-肉碱500-1000mg每日2-3次,可与辅酶Q10(100-200mg/天)联用。
食物质地优化
蒸煮、切碎、浸泡软化高纤维食物。
狭窄风险者控制食物颗粒<5mm,术后早期采用泥状食物
软化而非完全排除纤维,保留营养价值。
实施要点
基线全面评估→风险分层→个体化处方→多学科协作→4-8周随访调整(菌群动态监测)。
通过菌群数据指导精准营养干预,使其成为IBD综合治疗的核心组成部分。
🌈 益生菌
在炎症性肠病(IBD)中,益生菌的临床试验结果不一,这部分可能是由于现有益生菌在改变微生物组的组成和功能方面效果有限。
一种包含多种菌株的混合益生菌(如Lactobacillus spp.、Bifidobacterium spp.、Streptococcus spp.,即VSL#3),在诱导轻度至中度溃疡性结肠炎的缓解方面比安慰剂更有效,并且在预防复发性袋状结肠炎方面也显示出疗效。
E. coli Nissle 1917在溃疡性结肠炎患者中也表现出临床疗效,但相关研究较为有限。
新型益生菌菌株
近期研究发现,源自人乳的新型益生菌菌株短双歧杆菌SHMB 8001在DSS诱导的小鼠结肠炎模型中展现出显著治疗潜力。
该菌株通过多重机制发挥保护作用:增强肠道屏障功能(上调MUC2、occludin和claudin-1蛋白表达)、调节免疫炎症反应(上调IL-10并抑制IL-1β、IL-6和TNF-α)、提高粪便短链脂肪酸水平和结肠GPR43受体表达,以及重塑肠道微生物群(富集产短链脂肪酸菌属如双歧杆菌、乳酸杆菌)。
编辑
🌈 益生元
在炎症性肠病中研究最多的益生元包括低聚果糖和菊粉,其益处不一致。新研究有望通过引入合理设计的菌株群落,使其能够以条件依赖的方式定植或递送益生元,需要更多研究。
编辑
🌈 合生元
合生元通过益生菌与益生元的协同作用,在IBD治疗中展现出独特优势。临床前研究证实,多种合生元组合能有效减轻肠道炎症、调节免疫反应、增强屏障功能并改善菌群平衡。
编辑
未来需要更多研究来阐明作用机制、确定最佳组合方案,并探索其与常规疗法的协同效应。
🌈 后生元
后生元是指灭活微生物及其组分或代谢产物,能为宿主带来健康益处。这些成分通过调节免疫反应、抑制NF-κB通路、激活自噬等机制发挥抗炎作用,同时能重塑肠道菌群平衡。
编辑
相比活菌制剂,后生元具有稳定性高、安全性好、易于制剂开发等优势,为IBD治疗提供了新的微生物组靶向策略,但其临床应用仍需更多研究验证。
🌈 粪菌移植(FMT)
将健康捐赠者的粪便微生物群移植给患者,旨在重建健康的肠道生态。FMT在治疗复发性艰难梭菌感染中取得了巨大成功,但在IBD中的疗效尚不稳定,尤其是在克罗恩病中。其成功率受供体选择、移植方式以及受体宿主环境(如免疫状态)等多种因素影响。
在五项FMT的随机对照试验中,由于供体、给药方式和持续时间的不同,四项显示出统计学上的显著益处,缓解率在24%~53%之间。在FOCUS试验的长期随访中,35名在8周内通过每周FMT达到缓解的患者中,有34%在1年后仍保持缓解,这部分得益于自我启动的FMT(3名患者)或饮食改变(9名患者)。
间歇性低频FMT
在一项研究中,87%的患者能够通过每8周进行一次FMT维持临床缓解,持续达48周,尽管不到一半的患者实现了内镜缓解。
供体和受体特定因素
在一项针对UC的随机对照试验中,使用两个不同供体的反应率分别为10%和39%,这表明疗效存在差异。Roseburia inulinivorans和Eubacterium halli的富集,以及粪便短链脂肪酸的增加与缓解相关,而Escherichia spp.、Fusobacterium spp.和Candida spp.的增加则与缺乏反应相关。
FMT前Candida spp.丰度的增加与临床反应相关,而FMT后Candida spp.丰度的降低则表明疾病严重程度减轻。
在UC患者中,FMT前高丰度的白色念珠菌与FMT后细菌多样性增加和治疗成功率提高相关,表明真菌生态可能在细菌定植中发挥作用。
肠道菌群检测结合粪菌移植(FMT)可提高治疗炎症性肠病的疗效。通过持续干预和菌株动态管理,有助于用有益菌株替代疾病相关菌株,确保长期稳定性和定植。
🌈 限定细菌联盟与工程菌
基于对有益菌功能的理解,开发由特定功能的、明确的细菌菌株组成的活体生物药是更精准的策略。例如,包含产丁酸菌的菌群联盟或下一代益生菌。
关于下一代益生菌,详见谷禾文章:
更进一步,可以利用合成生物学技术,设计能够感知肠道炎症信号并原位分泌抗炎分子(如IL-10)或降解有害代谢物的“智能”工程菌。
🌈 噬菌体疗法
噬菌体(phages)是一种自我复制的病毒,能够感染细菌并利用其细胞机制进行复制。噬菌体针对多重耐药细菌的能力使其在炎症性肠病中的应用成为可能。
一种针对克雷伯氏肺炎菌的五种噬菌体组合在人体肠道IBD模型中有效抑制了肠道炎症,且健康志愿者食用后显示出良好的安全性和在下肠道的积累。
VE202是一种活性生物治疗产品,含有有益的梭状芽孢杆菌菌株,已在健康成年人中显示出安全性,为溃疡性结肠炎患者的潜在治疗试验铺平了道路(NCT05370885)。
一种包含10个菌株的18种厚壁菌门菌群(SER-301)在轻度至中度UC患者中测试,初步结果良好,但在2期试验中未能诱导临床缓解。
另一项涉及六种菌株的组合(MH002)的2a期随机对照试验显示,轻度至中度UC患者在使用该组合后,内镜Mayo评分改善了17%,并且粪便钙卫蛋白显著减少。
利用对细菌具有高度特异性的噬菌体,可以精准清除肠道中的特定病原菌(如AIEC、肺炎克雷伯菌),而不影响有益菌群,是一种极具潜力的微生物手术刀。
编辑
doi.org/10.1016/j.bpg.2025.102060
促进黏膜愈合的非免疫抑制疗法
与抑制炎症不同,直接促进肠道上皮修复和再生是另一条有吸引力的治疗路径,有望在不依赖免疫抑制的情况下实现黏膜愈合。
增强屏障功能
开发靶向紧密连接的药物,如MLCK抑制剂(如Divertin),可以直接增强上皮屏障的完整性,减少微生物易位。
靶向干细胞微环境
肠道干细胞(ISCs)是上皮再生的源泉。利用促进ISC增殖和分化的生长因子,如IL-22、GLP-2类似物(如替度格鲁肽),或通过移植间充质干细胞(MSCs)来改善干细胞微环境,是促进组织修复的潜在策略。
2024年2月23日,武田中国宣布,GLP-2(胰高血糖素样肽-2)类似物替度格鲁肽,正式获得NMPA批准,适用于治疗短肠综合征(SBS)成人和1岁及以上儿童患者。由此,替度格鲁肽由此成为中国首个治疗短肠综合征的GLP-2类似物。GLP-2的核心作用,则是调节胃肠道细胞的生长、增殖。
GLP-2当前唯一明确的适应症,是用于治疗短肠综合症,帮助患者吸收营养物质。短肠综合症主要病因是大规模小肠切除手术导致的肠道面积减少,从而引发营养吸收不良,造成其他综合症状。
目前,已有的治疗方式是通过肠外营养技术,为患者直接提高营养物质;或通过肠道修复增加对营养物质的吸收。
GLP-2药物恰好能够达成这一目标,其能够增加肠道上皮细胞,扩大接触面积,同时抑制肠胃蠕动,延长胃排空时间,从而增加肠道吸收。从临床数据来看,替度格鲁肽也的确给患者带来了新希望。
类器官移植
利用患者自身的干细胞在体外培养出“迷你肠道”(肠道类器官),再将其移植回受损的肠道黏膜,有望实现自体组织的再生和修复。这一技术虽然仍处于实验阶段,但展现了巨大的应用前景。
然而,促进再生也需警惕潜在风险,如过度增殖可能增加肿瘤形成的风险,以及再生与纤维化通路之间的重叠。因此,需要精准调控这些再生通路。
促进黏膜愈合的潜在治疗靶点
编辑
doi.org/10.1038/s41575-022-00604-y
黏膜愈合涉及多个层面,包括微生物群、饮食、肠道屏障、免疫细胞和干细胞微环境。图中展示了针对这些不同层面的潜在疗法,如通过饮食干预调节微生物,通过MLCK抑制剂增强屏障,通过IL-22或干细胞移植促进干细胞微环境的再生。
临床前干预与预防的展望
IBD漫长的临床前阶段为疾病预防提供了宝贵的时间窗口。未来的策略将聚焦于在高风险人群中进行早期筛查和干预。
风险分层
通过整合遗传风险评分、家族史、环境暴露史以及临床前生物标志物(如血清抗体、粪便钙卫蛋白、微生物组特征),可以识别出IBD的高风险个体。
早期干预
对于高风险人群,可以在临床前阶段采取干预措施。
例如,对于低风险个体,可以推荐改善饮食和生活方式;对于中高风险个体,可以考虑使用益生菌、益生元或靶向微生物的疗法。
对于即将进入临床期的极高风险个体,甚至可以考虑使用低剂量的免疫调节剂或靶向药物进行“截断治疗”,以阻止疾病的最终发生,类似于在1型糖尿病和类风湿关节炎领域已取得成功的预防性治疗。
实现这一目标需要更精准的生物标志物来动态监测疾病进程,以及更安全有效的早期干预手段。同时,必须关注并解决不同人群在疾病风险和医疗可及性上的差异。
炎症性肠病是一种由遗传与环境因素复杂相互作用驱动的慢性免疫介导疾病。其发病并非一蹴而就,而是经历了一个漫长的、多阶段的临床前演变过程。在这一过程中,肠道屏障功能的逐步丧失、微生物生态的持续失调、以及宿主免疫应答的异常活化和耐受丧失,共同构成了驱动疾病发展的核心病理生理学基础。基因-微生物相互作用,如NOD2通路的功能障碍,以及糖基化等翻译后修饰的改变,在这一过程中扮演了关键的调控角色。
未来的研究应致力于开发更灵敏、更特异的生物标志物组合,以实现对高风险人群的精准识别和疾病进程的动态监测。其中,肠道菌群检测作为评估微生物生态状态的重要手段,结合宿主免疫标志物和遗传风险评分,有望为临床前IBD的早期识别提供多维度的评估依据。如文中所述,特定菌群特征的变化可能先于临床症状出现,这为疾病风险分层和早期干预提供了潜在的时间窗口。
治疗上,应从单一的免疫抑制转向更加多元化和个体化的策略,包括靶向微生物组的生态疗法、直接促进黏膜修复的再生医学方法,以及在疾病极早期进行干预的截断治疗。科学界越来越关注在疾病自然史的早期阶段实施精准干预的可能性,通过整合多组学数据和动态生物标志物监测,有望在正确的时间对合适的个体实施优化的干预策略,从而改变IBD的疾病轨迹,推动临床实践从疾病治疗向风险预防的范式转变。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献:
Cadwell K, Loke P. Gene-environment interactions shape the host-microbial interface in inflammatory bowel disease. Nat Immunol. 2025 Jul;26(7):1023-1035.
Iliev ID, Ananthakrishnan AN, Guo CJ. Microbiota in inflammatory bowel disease: mechanisms of disease and therapeutic opportunities. Nat Rev Microbiol. 2025 Aug;23(8):509-524.
Deleu S, Sabino J. Cutting edge developments and novel targets in IBD: Microbiome in IBD. Best Pract Res Clin Gastroenterol. 2025 Sep;78:102060.
Vaghela, P., Dave, B., Dabhade, A. et al. Redrawing the gut map: evolving probiotic approaches to microbiota modulation in inflammatory bowel disease. Antonie van Leeuwenhoek 119, 51 (2026).
Villablanca EJ, Selin K, Hedin CRH. Mechanisms of mucosal healing: treating inflammatory bowel disease without immunosuppression? Nat Rev Gastroenterol Hepatol. 2022 Aug;19(8):493-507.
Brazil JC, Parkos CA. Finding the sweet spot: glycosylation mediated regulation of intestinal inflammation. Mucosal Immunol. 2022 Feb;15(2):211-222.
Rudbaek JJ, Agrawal M, Torres J, Mehandru S, Colombel JF, Jess T. Deciphering the different phases of preclinical inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2024 Feb;21(2):86-100.
Jang KK, Heaney T, London M, Ding Y, Putzel G, Yeung F, Ercelen D, Chen YH, Axelrad J, Gurunathan S, Zhou C, Podkowik M, Arguelles N, Srivastava A, Shopsin B, Torres VJ, Keestra-Gounder AM, Pironti A, Griffin ME, Hang HC, Cadwell K. Antimicrobial overproduction sustains intestinal inflammation by inhibiting Enterococcus colonization. Cell Host Microbe. 2023 Sep 13;31(9):1450-1468.e8.
Liu G, Wang X, Hao Y, Tu L, Mei Y, Zhang T, Wang Y. Bifidobacterium Breve SHMB 8001 Alleviates DSS-Induced Colitis in Mice Via Modulating the Intestinal Barrier and Gut Microbiota. J Food Sci. 2026 Feb;91(2):e70903.
谷禾健康
前几日,南方医科大学深圳医院院长周宏伟教授团队在国际顶尖医学期刊《Nature Medicine》上发表了一项重要研究。首次揭示一种名为活泼瘤胃球菌(Ruminococcus gnavus)的细菌产生的物质——苯乙胺,在肝性脑病发生中的关键作用。
同时谷禾的人群检测数据及相关研究也发现,活泼瘤胃球菌(R.gnavus)广泛存在于人体中,超过90%的人可以检测到。并且在例如肥胖、抑郁症、炎症性肠病、2型糖尿病等疾病患者中丰度偏高。
想必很多人对这个名字比较陌生,可能只知道瘤胃球菌属。虽然其名为活泼瘤胃球菌,但关于其的具体归属还有争议(有一段时间它被归类为Blautia属,但最近又被重新归为Mediterraneibacter属)。
活泼瘤胃球菌(Ruminococcus gnavus)是一种革兰氏阳性、严格厌氧的细菌,属于毛螺菌科,普遍存在于人类和动物的肠道中,是婴儿肠道的早期定植者,并在成年后也持续存在,占健康个体肠道微生物群丰度的0.1%至2%。
拉丁语gnavus的意思是忙碌,R.gnavus具有积极的碳水化合物发酵能力,可以将复杂的淀粉降解成更简单的分子。在淀粉、麦芽糖和岩藻糖基化聚糖等食物消化中具有重要功能。并产生乙酸盐、丙酸盐、甲酸盐和乙醇,但不产生丁酸盐。
虽然R.gnavus能有效利用植物性食物中的糖,但肠道中的糖并非全来自食物,人体自身也会生成糖类,如构成肠道内壁的粘蛋白聚糖。一些菌株依赖这些糖,并进化出策略以持续获取,可能破坏肠道屏障。
活泼瘤胃球菌(R.gnavus)生活在我们的肠道内壁,因此可以很好地感知肠道环境的变化并将其与身体的其他部分进行沟通。这在我们的免疫系统中发挥作用,也会对体内其他器官的功能产生影响。
研究发现R.gnavus能够产生一种炎性多糖,该分子诱导树突状细胞产生炎性细胞因子,如TNFα(肿瘤坏死因子),可能导致人体的炎症反应。并且越来越多的证据表明,R.gnavus的过度生长可能与某些肠道疾病有关,包括炎症性肠病(IBD)、肠易激综合征(IBS)和结直肠癌。
此外,研究还发现,患有影响身体其他部位的健康问题(包括感染、过敏、肥胖、代谢综合征、2型糖尿病、肝脏疾病和神经系统疾病)的人肠道中活泼瘤胃球菌(R.gnavus)的水平较高,说明R.gnavus与这些疾病之间存在相关性。
注:这种关联并不一定意味着R.gnavus是这些疾病的原因。相反,它可能只是表明这些疾病为R gnavus在肠道中的生长创造了有利条件。
活泼瘤胃球菌(Ruminococcus gnavus)到底是多种疾病的风险标志物还是正常的肠道共生菌?让我们来一探究竟。
活泼瘤胃球菌(Ruminococcus gnavus)是一种革兰氏阳性厌氧菌,属于厚壁菌门。R.gnavus于1974年首次从人类胃肠道的粪便和内容物中分离出来。当时它被描述为专性厌氧、非孢子形成、非运动或运动球菌,具有1-3个鞭毛,以链状或成对出现。
R.gnavus ATCC 35913 的扫描电子显微镜图像
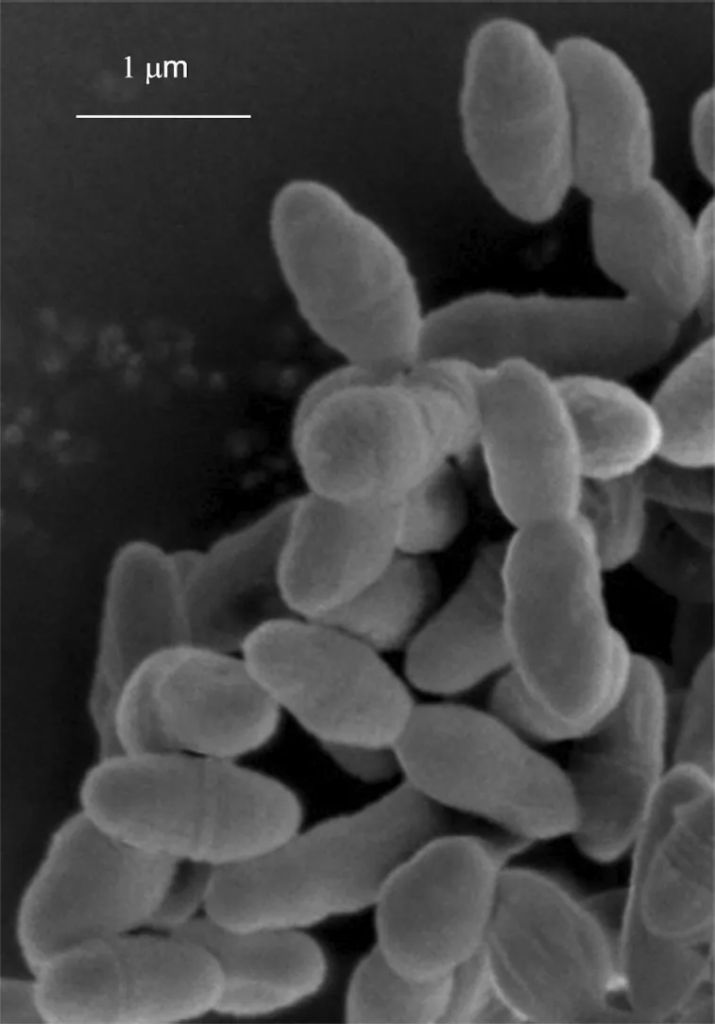
拉丁语gnavus的意思是忙碌,指的是该物种的积极发酵能力。这种细菌具有特殊的酶,可以将复杂的淀粉降解成更简单的分子。在淀粉、麦芽糖和岩藻糖基化聚糖等食物消化中具有重要功能。可以产生乙酸盐和甲酸盐,但不产生丁酸盐。
R.gnavus的细胞壁由一种复杂的葡配甘露聚糖组成,它具有高度的免疫原性,可以在宿主中诱导特异性抗体。
R.gnavus的脂聚糖是一种附着在脂质上的聚糖,也是免疫原性的,可以调节宿主免疫系统。不同品系的R.gnavus具有不同的结构。
R.gnavus的基因组由一条约2.5Mb的圆形染色体和几个不同大小的质粒组成。它编码许多参与碳水化合物代谢的基因。其基因组DNA的G+C含量为43mol%。
虽然R.gnavus ATCC 29149无法在氧气存在下生长,但它确实表现出对大气氧气的一定耐受性,10%-15%的细胞在暴露于氧气1小时后仍保持活力,3小时后下降到0.05%-0.1%左右
该菌株对阿莫西林、替卡西林、头孢噻肟、亚胺培南、普那霉素、万古霉素、利奈唑胺、甲硝唑、利福平、甲氧苄啶/磺胺甲噁唑敏感,对林可霉素、红霉素、左氧氟沙星耐药。
▸ 在生命早期就定植于肠道
活泼瘤胃球菌(R.gnavus)是“正常”人类肠道微生物群的常见成员,多项证据表明其在生命早期就普遍存在。
生命第一年,分娩方式、饮食和遗传等因素都会影响微生物定植。一项针对25名1至24个月大婴儿样本的研究中,确定R.gnavus普遍存在;具体来说,在25个样本中的22个(88%)都检测到了活泼瘤胃球菌(R.gnavus)。
▸ 可能在婴儿消化与代谢中发挥作用
活泼瘤胃球菌(R.gnavus)可能是婴儿肠道的主要物种,其水平与双歧杆菌属相当。通过16S rRNA基因测序分析的研究强调了R.gnavus与母乳喂养或不同配方奶粉之间的饮食关联。
例如,在一项针对90名2个月大婴儿(每组30名)的比较研究中,与喂食牛奶的婴儿中更多样化的微生物特征相比,母乳或山羊奶喂养的婴儿中,毛螺菌科(Lachnospiraceae)的存在仅限于一种物种,即R.gnavus。
在另一项随机对照试验比较了喂食乳糖牛奶配方奶粉(CMF)与广泛水解蛋白配方奶粉(EHF,适用于牛奶蛋白不耐受婴儿)的婴儿粪便微生物群。结果显示,随着时间推移,EHF组中R.gnavus丰度增幅最大,成为区分不同食物喂养微生物组的显著特征。
这些数据表明,R.gnavus可能在肠道微生物群构建中发挥作用,并与婴儿正常体重增长和状态相关。
▸ 淀粉等固体食物会增加R.gnavus丰度
R.gnavus的相对丰度变化可能体现了婴幼儿微生物群的正常“成熟”。一些证据表明,R.gnavus在断奶后相对丰度增加,而其他物种,如双歧杆菌,已知相对丰度降低。
注:最近一项针对怀孕和分娩时婴儿肠道微生物群(脐带血)的研究显示,R.gnavus与产前血浆25-羟基维生素D(25[OH]D)呈正相关,但与脐带25[OH]D呈负相关。
一项研究调查了断奶对605名婴儿微生物群的影响,结果显示首次引入固体食物后,R.gnavus所属的比例显著增加。短链脂肪酸(SCFA)分析也反映了肠道微生物群的变化,数据显示断奶期间丁酸盐的产生发生变化。
对28名尼日利亚婴儿出生后第一年内粪便微生物群的分析显示,母乳喂养婴儿以R.gnavus、Collinsella和Sutterella为主。丁酸盐在断奶开始时(4-6个月大)首次检测到,引入固体食物后乙酸盐和乳酸仍然较高,12月龄时丁酸盐水平较低,与R.gnavus的已知发酵能力一致。
综上所述,这些研究支持R.gnavus在肠道早期定植中的作用。一些R.gnavus菌株能够代谢人乳低聚糖(HMO)和粘蛋白,其结构聚糖相似性进一步支持该物种在其他细菌定植过程中发挥重要作用的假设。
▸ R.gnavus在成年后也持续存在于肠道
R.gnavus在成年后也持续存在;根据对来自北美和欧洲的健康成年人的粪便样本的宏基因组测序,发现它是存在于≥90%的个体中的物种。
最近,在来自中国、埃塞俄比亚、西班牙、美国和瑞典的健康成年人的公开肠道微生物群宏基因组中发现了R.gnavus平均丰度为0.3%。
谷禾多年的检测数据显示,国人活泼瘤胃球菌(R.gnavus)检出率超过95%,表明其在人群中普遍存在,是肠道微生物群的基本组成部分。
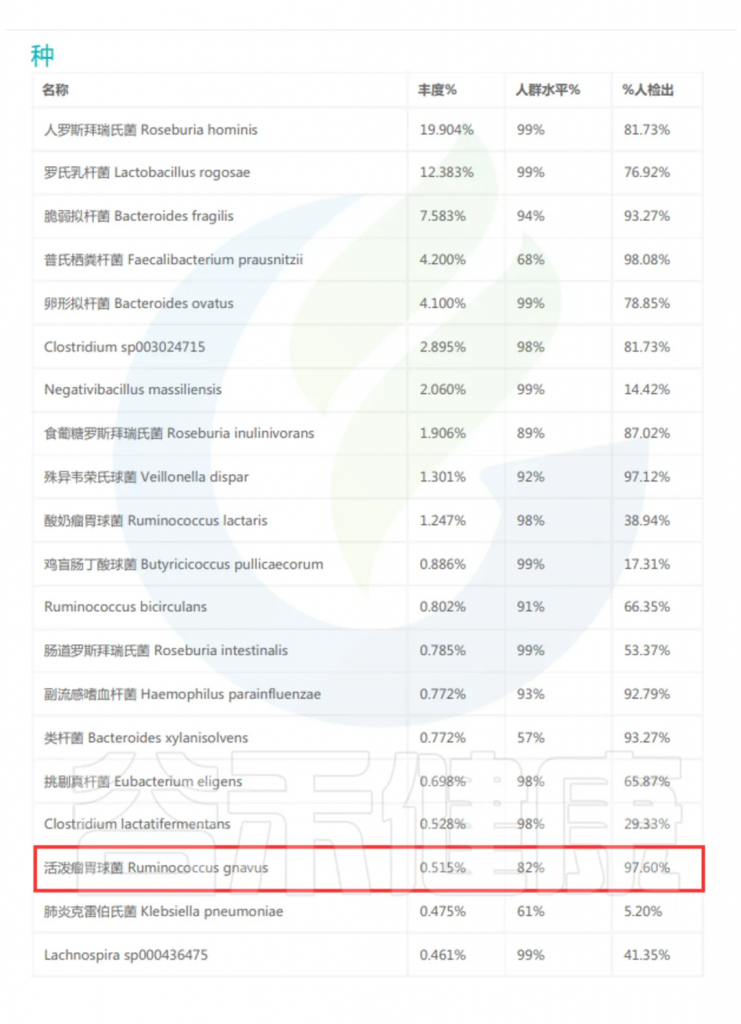
▸ R.gnavus有助于消化复杂的碳水化合物
瘤胃球菌是分解碳水化合物最有效的细菌属之一。我们知道瘤胃球菌是“降解抗性淀粉的关键菌”。瘤胃球菌能有效地分解坚硬的植物物质,如细胞壁,这有助于人体消化水果蔬菜,不太可能引起胃痛。
注:抗性淀粉是在小扁豆、豆类和未加工的全谷物等高纤维食物中发现的复杂碳水化合物。
这种细菌具有特殊的酶,可以将这些复杂的淀粉降解成更简单的分子。这也与它利用一些母乳低聚糖和在粘蛋白聚糖表位上觅食的能力有关。值得注意的是,R.gnavus ATCC 29149具有一种独特的唾液酸代谢途径,专门用于2,7-脱水Neu5Ac。
R.gnavus碳水化合物的最终发酵产物包括乙酸盐、甲酸盐和乙醇,以及丙醇和丙酸盐,但不包括丁酸盐。
尽管活泼瘤胃球菌(R.gnavus)是人类肠道微生物群的组成部分,正常情况下在健康个体的肠道中普遍存在,但许多研究表明,当其丰度过高时,可能与多种疾病的发生发展存在密切关联。这些疾病不仅包括与肠道相关的疾病,如炎症性肠病(IBD)、肠易激综合征、结直肠癌,还涉及一些非肠道相关的疾病,如代谢性疾病和免疫系统紊乱等。
R.gnavus与疾病和潜在分子介质的关联
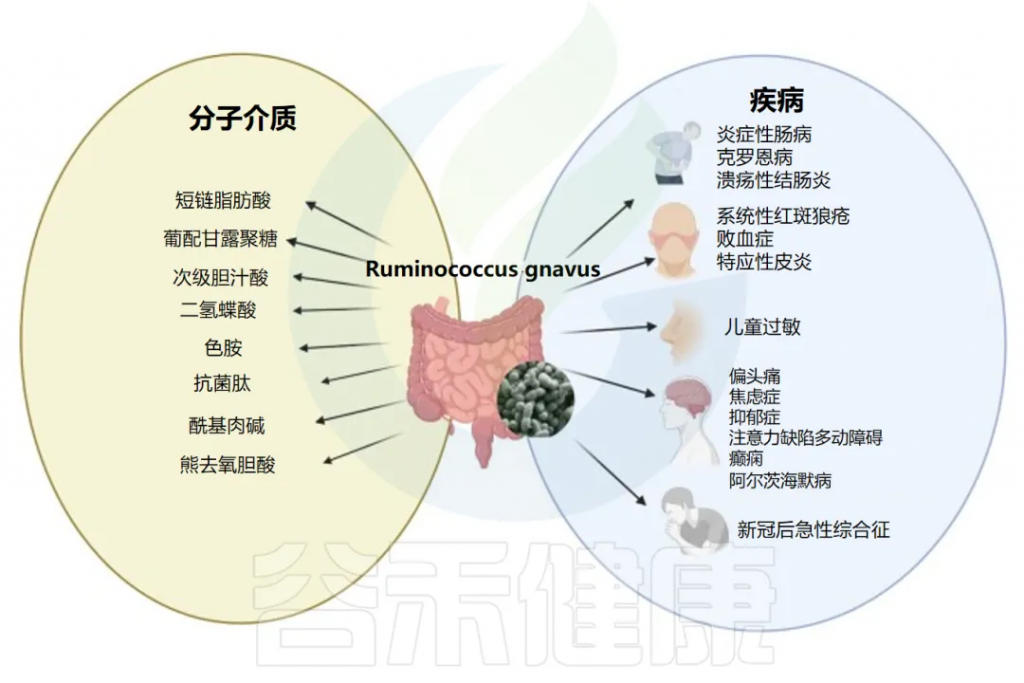
Crost EH,et al.FEMS Microbiol Rev.2023
1
炎症性肠病
克罗恩病(CD)和溃疡性结肠炎(UC)是多因素慢性炎症性肠病,一直与肠道微生物失调有关。越来越多的研究表明R.gnavus与炎症性肠病(IBD)之间存在正相关,尽管因果关系仍有待证明。
▸ R.gnavus在IBD患者中含量增加
分析了炎症性肠病(IBD)患者肠粘膜组织的早期研究表明,粘膜相关细菌的丰度增加。例如,与健康粘膜相比,R.gnavus和R.torques在CD和UC粘膜中含量更高,而主要的粘液降解细菌A.muciniphila在CD和UC粘膜中的含量明显较低。
在一项后续研究中,分析了68名CD患者、84名未受影响的亲属和55名匹配的对照者粪便样本,并使用实时PCR进行定量。结果显示,R.gnavus是五种与菌群失调相关的细菌中唯一在克罗恩病(CD)中丰度增加的物种。
通过内窥镜采集IBD患者粘膜表面样本(43名UC患者、26名CD患者和14名非IBD对照),利用16S rRNA 基因测序分析粘膜相关微生物群落。结果显示,与非IBD对照相比,CD患者变形菌门丰度显著增加,而厚壁菌门和拟杆菌门丰度显著降低。其中,埃希氏菌属、瘤胃球菌属(R.gnavus)、放线杆菌属和肠球菌属显著增加,而粪杆菌属、粪球菌属、普雷沃氏菌属和罗氏菌属显著减少。
▸ R.gnavus能够诱导产生炎性细胞因子
一项研究发现,肠道细菌R.gnavus产生了炎性多糖,其种群在克罗恩病患者的症状发作期间丰度增加。R.gnavus可以合成并分泌具有鼠李糖骨架和葡萄糖侧链的复杂多糖glucorhamnan,它有效诱导树突细胞分泌炎性细胞因子(TNFα),并可能导致R.gnavus与克罗恩病之间的关联。
另一项基于对40对双胞胎的肠道微生物群分析的研究显示,在回肠CD患者中,肠杆菌科和R.gnavus的丰度增加,而粪杆菌属(Faecalibacterium)和罗氏菌属(Roseburia)等核心细菌的消失。
▸ R.gnavus丰度与IBD疾病结果相关
R.gnavus是与克罗恩病相关的菌群,已被确定为导致克罗恩病症状的原因之一。在克罗恩病患者中活泼瘤胃球菌(R.gnavus)的相对丰度升高与症状严重相关。
通过Illumina MiSeq对IBD患者(70名UC,39名CD)及100名健康对照的粪便微生物群分析显示,它们在 IBD中表现出差异丰度。结合20名IBD患者和12名对照的宏基因组分析与R.gnavus分离株的全基因组测序,强调了R.gnavus菌株水平的重要性。
研究还揭示了IBD特异性、菌株特异性的基因,这些基因参与氧化应激反应、粘附、铁获取和粘蛋白利用,可能赋予R.gnavus在IBD患者肠道中的适应性优势。在小鼠模型中,提出了多种支持R.gnavus与 IBD关联的机制。
此外,分析了化疗后接受造血细胞移植和干细胞植入的癌症患者的>10000个纵向微生物群样本,发现R.gnavus的绝对丰度与淋巴细胞率负相关,与其生长速率正相关,表明R.gnavus可能驱动高中性粒细胞与淋巴细胞比率,这一特征与IBD不良预后密切相关。
注:R.gnavus的富集还与CD患者的心理评分呈正相关,与次级胆汁酸TDCA和TLCA呈负相关,进一步表明其与患者心理状态和疾病进展的关联。
综上所述,一些研究人员认为R.gnavus可以作为 炎症性肠病(IBD)的生物标志物,但因果关系仍有待证明。
2
肠易激综合征
肠易激综合征(IBS)是一种慢性异质性疾病,影响约6%的人口。IBS的病理生理学是多因素的,其中包括肠道微生物群的改变。
对IBS患者、健康个体粪便和结肠活检样本,以及小鼠模型样本的细菌测序分析表明,症状和炎症的严重程度可能与粘液相关细菌(如R.gnavus)的变化密切相关。
编辑
▸ 在腹泻型IBS患者中明显更丰富
对80名IBS患者(16-70岁)和65名无IBS对照的粪便进行鸟枪法和16S rRNA 测序显示,R.gnavus和毛螺菌科其他物种在 IBS 中显著更丰富,尤其在腹泻型IBS(IBS-D)患者中,与外周5-羟色胺(5-HT)水平和严重症状相关。
这一现象也在R.gnavus单定植小鼠中得到验证。代谢组学和宏基因组学研究表明,R.gnavus的富集与二氢蝶酸水平降低密切相关,二氢蝶酸是叶酸合成的重要中间体,其失调可能导致IBS病理变化。
此外,在新诊断的初治IBD或IBS患者(13UC、10CD和26IBS)与健康对照中,基于粪便和粘膜微生物群的16S rRNA 基因测序进一步证实了R.gnavus 作为区分疾病表型潜在生物标志物的作用。
3
结直肠癌
多项宏基因组学研究表明,结直肠癌(CRC)与肠粘膜相关微生物群的显著变化有关。
▸ 粘膜菌群失调与肿瘤形成存在关联
异常隐窝病灶(ACF)是CRC患者结肠中最早可识别的形态学病灶。对接受结肠镜筛查或监测个体的粘附细菌分析显示,与正常粘膜相比,ACF的细菌微生物组谱异质性显著更高;KRAS癌基因突变与R.gnavus呈正相关,提示特定结肠细菌与CRC相关突变之间可能存在联系。
这些结果表明,正常粘膜微生物群的扰动可能是早期肿瘤形成的危险因素,粘膜菌群失调可能影响ACF的组织微环境和行为,促进其向高级肿瘤发展。
此外,最近一项研究通过16S扩增子测序分析CRC患者治疗前后肠道微生物群,发现R.gnavus与脂肪细胞因子信号通路和过氧化物酶体通路相关。
4
过敏、免疫和炎症
▸ R.gnavus可能对特应性皮炎有一定保护作用
肠道微生物组失调与儿童过敏密切相关,R.gnavus 是儿童过敏的重要参与者。研究表明,患特应性皮炎(AD)的婴儿肠道微生物群与健康婴儿存在差异。通过对129名婴儿队列中随机选取的40名6个月大婴儿(20名对照组,20名AD患者)的肠道微生物组进行全宏基因组测序,发现与免疫发育相关的功能基因存在差异。AD组中A.muciniphila、R.gnavus和Lachnospiraceae bacterium 2_1_58FAA的定植减少,与免疫发育迟缓显著相关。临床前研究进一步支持了R.gnavus在特应性皮炎模型中的保护作用。
▸ 食物或呼吸道过敏儿童中R.gnavus升高
相比之下,在受食物或呼吸道过敏影响的儿童中观察到R.gnavus(和F.prausnitzii)的丰度更高。在一项前瞻性双胞胎队列的研究中,在过敏表现出现之前观察到粪便微生物群中R.gnavus的丰度增加,并且与呼吸道过敏或呼吸道过敏与特应性湿疹共存有关。
在小鼠模型中,添加R.gnavus ATCC 29149 导致气道高反应性和炎症(哮喘),表现为结肠和肺中辅助T细胞2的扩增,以及嗜酸性粒细胞和肥大细胞浸润结肠和肺实质。
▸ 一些炎症反应中R.gnavus增多
系统性红斑狼疮(SLE)患者中R.gnavus丰度显著增加,且与整体疾病活动呈正比,在狼疮性肾炎患者中尤为明显。狼疮性肾炎患者的粪便中sIgA包被的R.gnavus细菌更多,血清IgG水平升高,主要针对R.gnavus菌株特异性细胞壁脂聚糖抗原。
R.gnavus水平升高也与脊柱关节炎相关,这是一类炎症性风湿病,但其机制尚不明确。此外,COVID-19患者(未使用抗生素)及长期并发症患者的肠道微生物组中R.gnavus水平较高,可能与细菌的肠肺易位或免疫与炎症调节有关。
5
代谢综合征
▸ R.gnavus与体脂率、腰围、血清甘油三酯等指标相关
R.gnavus与代谢综合征的多个特征密切相关,包括体脂百分比增加。这一关联得到了以挪威20-94岁参与者为基础的大型发现队列(n=2875)及两个复制队列(n=999和n=1341)的分析支持。
编辑
在联合队列中,33.7%的参与者检测到R.gnavus,其存在与脂肪量、腰围、血清甘油三酯、C反应蛋白(CRP)、HbA1c增加及HDL降低相关。这些关联在调整混杂因素后依然显著,且在不同性别和年龄(以中位年龄 59.6 岁为界)分层分析中表现一致。
6
肥胖
▸ R.gnavus在肥胖者中更丰富
在一项横断面多种族肥胖表型研究(812 名男性,843名女性,60-77 岁)中,16S rRNA 基因测序显示 R.gnavus与能量调整饮食炎症指数(E-DII)和肥胖表型相关。
另一项研究发现,在41名BMI正常者中,R.gnavus 与内脏脂肪密切相关,并与代谢指标呈正相关。早期研究也表明,R.gnavus在肥胖者中明显更丰富,并在减重期间减少,且与高BMI呈正相关。此外,一项研究显示,R.gnavus在对减肥手术无反应的患者中更为丰富。
注:瘤胃球菌喜欢植物中的多糖。如果肠道中有过多的瘤胃球菌,可想而知细胞会吸收更多的糖,那就不可避免地导致体重增加。
▸ R.gnavus会影响脂质代谢及信号通路
最近的动物研究表明,R.gnavus影响宿主代谢物。在高脂肪饮食小鼠中,R.gnavus影响肝脏的信号通路和下游脂质代谢,特别是降低FGF21表达,增加肝脏甘油三酯水平、血清总胆固醇和低密度脂蛋白(LDL)水平,所有这些都会导致代谢紊乱。
7
冠状动脉和肝脏疾病
▸ 冠状动脉疾病晚期患者R.gnavus相对丰度增加
肠道微生物组的改变与心血管疾病相关。一项病例对照研究通过16S rRNA测序分析了53名晚期冠状动脉疾病(CAD)患者与53名年龄、性别、种族和BMI匹配的对照者的粪便微生物群,发现CAD患者的肠道微生物组丰富度和均匀度降低。R.gnavus是相对丰度增加超过数倍的五个分类群之一,并在调整糖尿病和血脂异常等风险因素后,与晚期CAD的存在显著相关。
▸ 在脂肪性肝病肝硬化中丰度显著增加
宏基因组测序显示,R.gnavus是脂肪性肝病(MASLD)肝硬化和脂肪性肝病-肝细胞癌(HCC)患者中最丰富的五种细菌之一,且在MASLD-HCC患者中丰度最高。
此外,R.gnavus与MASLD-HCC和MASLD肝硬化患者的细胞毒性CD8+ T细胞呈负相关,而在MASLD合并冠心病患者中,其丰度低于仅患冠心病的个体。然而,这些研究未包含MASLD对照组,限制了对MASLD肠道微生物组的理解。
已有研究表明,与健康对照和脂肪性肝病对照相比,脂肪性肝病肝硬化患者的R.gnavus丰度显著增加,暗示其可能与脂肪性肝病向肝硬化的进展有关。
▸ 驱动肝性脑病
高达50-70%的肝硬化患者会发展为肝性脑病(HE),这与肠道菌群失调密切相关,机制尚不清楚。通过构建肠脑模块评估宏基因组数据集中的细菌神经毒素,研究人员发现主要来自R.gnavus的苯丙氨酸脱羧酶(PDC)基因在肝硬化患者中增加了约10倍,在HE患者中更高。
用R.gnavus定植的肝硬化、不健康的小鼠表现出脑苯乙胺(PEA)积累,以及记忆障碍、对称性震颤和皮层特异性神经元丢失,通常见于肝性脑病患者。
8
2型糖尿病
▸ 2型糖尿病患者中R.gnavus较高,而抗炎细菌丰度较低
肠道菌群的变化和慢性低度炎症在2型糖尿病(T2D)发展中起关键作用。一项对T2D患者粪便样本的初步研究发现,R.gnavus、Lactobacillus ruminis、Bacteroides caccae、Butyricimonas 和 Collinsella aerofaciens丰度较高,而抗炎细菌F.prausnitzii和Butyrivibrio丰度较低。
在一项随访的人群队列研究中,R.gnavus被确定为与新发2型糖尿病(T2D)持续相关的四个物种之一。对134名糖尿病前期成年人的分析显示,梭菌目(Clostridiales)和阿克曼菌(A.muciniphila)丰度降低,而R.gnavus丰度增加。一项基于258名T2D患者的研究发现,富含R.gnavus的微生物簇与适中血糖、严重胰岛素抵抗、高胆固醇水平相关。
▸ 与妊娠晚期空腹血糖呈正相关
妊娠糖尿病(GDM)研究表明,R.gnavus与妊娠晚期空腹血糖呈正相关。此外,糖尿病周围神经病变(DPN)研究显示,甘氨酸熊去氧胆酸和牛磺熊去氧胆酸与R.gnavus和Phascolarctobacterium的丰度呈正相关。
9
感染与脓毒症
编辑
▸ R.gnavus可能导致外周感染及血液感染
R.gnavus感染病例包括血液恶性肿瘤和外周感染,如泌尿生殖系统感染。例如,一名患深部浸润性子宫内膜异位症和盆腔炎的女性在双侧输卵管卵巢脓肿中培养出R.gnavus。
R.gnavus血流感染还与憩室病、化脓性关节炎、胆囊穿孔、多发性骨髓瘤和乙状结肠癌化疗患者的肠穿孔以及小肠疝和穿孔引起的粪便腹膜炎相关。这些研究表明R.gnavus感染的致病性与胃肠道损伤密切相关。
10
神经系统疾病
新出现的证据表明,微生物失调可导致神经认知障碍的发生和发展,如精神分裂症、抑郁症、双相情感障碍、焦虑症和痴呆症。
有人认为,饮食、生活方式、遗传因素和外部压力源“合作”调节肠道微生物群组成,从而影响大脑的反应。越来越多的研究报告了患有神经系统疾病的患者R.gnavus水平的变化。
▸ 焦虑症、脑癫痫患者R.gnavus增加
尽管研究规模有限,但焦虑症患者的肠道微生物丰富度和多样性显著降低,同时R.gnavus丰度增加。一项为期8周的临床试验测试了益生菌对抑郁症的治疗效果,结果显示益生菌组和安慰剂组均有症状减轻,但肠道微生物群未发生显著变化。然而,重度抑郁患者的R.gnavus相对丰度显著增加,并与抑郁焦虑压力量表评分呈正相关。
另一项研究发现,R.gnavus与脑癫痫患者的癫痫发作显著正相关,这种神经系统疾病以癫痫发作易感性为特征,与健康对照组相比差异明显。
▸ 阿尔茨海默病和认知障碍患者中R.gnavus丰度增加
随着人口老龄化的加剧,微生物代谢物在神经退行性疾病如阿尔茨海默病(AD)和帕金森病(PD)进展中的作用受到越来越多关注。在AD患者中,主要特征是淀粉样蛋白β(Aβ)在记忆相关脑区的积累。一项基于AD小鼠模型的研究发现,Aβ蛋白的过表达显著影响肠道微生物群,其抗菌活性导致R.gnavus等物种的丰度变化。
另一项研究调查了PD患者的肠道微生物群,并根据疾病严重程度分组。结果显示,路易体痴呆患者中R.gnavus和粪杆菌的相对丰度更高。这与另一项研究的结果一致,该研究发现帕金森病(PD)患者肠道中R.gnavus的丰度显著高于健康对照组。
在易患神经认知障碍的老年人和患有心理症状的克罗恩病患者中观察到R.gnavus的富集。与健康对照相比,中风后认知障碍患者的R.gnavus丰度增加,且与认知测试结果呈负相关。对患偏头痛的老年妇女与健康对照(年龄和BMI匹配)的粪便样本进行宏基因组学分析显示,R.gnavus是偏头痛组中显著富集的物种之一。
综上所述,这些研究表明R.gnavus在神经系统疾病中的丰度增加,尽管因果关系尚未明确。文献倾向于将粘膜相关或粘液溶解细菌的存在与肠道屏障通透性增加或炎症相关联,导致细菌代谢物或分子泄漏,触发炎症并向大脑发出信号。例如R.gnavus ATCC 29149 能够将色氨酸脱羧形成色胺,提高了肠道和中枢神经系统互作的可能性。
然而,目前尚无证据表明R.gnavus能物理改变粘膜屏障。与多形拟杆菌(Bacteroides thetaiotaomicron)或A.muciniphila等物种因其广泛的粘蛋白-聚糖降解能力可分解完整的粘蛋白聚糖链不同,R.gnavus的粘蛋白聚糖降解能力具有菌株特异性,仅限于从上皮屏障外觅食聚糖表位。
R.gnavus与疾病关联的研究
编辑
Crost EH,et al.FEMS Microbiol Rev.2023
▸ 高糖高肉会增加R.gnavus
饮食是肠道微生物群的主要调节因素。在题为“满足欧洲老年人口健康老龄化特定需求的新饮食策略”(NU-AGE)的研究中,调查了饮食、肠道微生物群和认知之间的关联,结果表明R.gnavus和Collinsella spp.与富含动物产品的饮食有关,被称为“促炎物种”。
通过对多种族队列研究(5936名参与者)的粪便样本进行16S rRNA基因测序,确定了饮食质量与肠道微生物组的长期关联。结果显示,R.gnavus的存在与健康饮食指数呈负相关。
健康饮食指数(HEI)由13个组成部分组成,最高100分,包括9个充足性组成部分(总水果、全水果、总蔬菜、蔬菜和豆类、全谷物、乳制品、总蛋白质食品、海鲜和植物蛋白以及脂肪酸)以及四个适度成分(精制谷物、钠、添加糖和饱和脂肪)。大多数成分按每1000大卡摄入量的摄入量评分。2
以羊肉、猪肉等红肉为基础的饮食会增加活泼瘤胃球菌(Ruminococcus gnavus)的丰度。
此外,经常食用糖果、饮料、糕点等,也会导致Ruminococcus gnavus升高,并降低了肠道中某些有益菌。
▸ 富含多酚的食物有助于减少R.gnavus
针对R.gnavus的饮食干预研究较少。一项对23名健康个体的随机交叉试验发现,在高红肉饮食中添加高直链淀粉玉米可降低R.gnavus的比例;补充富含多酚的红树莓可减少糖尿病前期和胰岛素抵抗成人的R.gnavus。这表明针对活泼瘤胃球菌(R.gnavus)的饮食干预可作为促进健康的策略。
▸ 益生菌调节
唾液乳杆菌(Lactobacillus salivarius Ren)显著减少R.gnavus的数量。
Lactobacillus paracasei DG干预后,瘤胃球菌丰度下降55%(P = 0.016)
口服长双歧杆菌BB536 和鼠李糖乳杆菌HN001 1个月后,Ruminococcus gnavus丰度减少。
此外,我们推测多形拟杆菌(Bacteroides thetaiotaomicron)等能够降解碳水化合物的有益细菌可能会与R.gnavus竞争,从而抑制R.gnavus的丰度。
但在注射了乳杆菌的小鼠小肠微生物群中,瘤胃球菌过度生长。
以下的细菌也可能对R.gnavus具有抑制作用
Bifidobacterium
Coriobacteriales
Adlercreutzia
Collinsella
Bacteroidales
Bacteroides
Porphyromonadaceae
Odoribacter
Parabacteroides
Porphyromonas
Prevotella
Rikenellaceae
Alistipes
Turicibacter
Streptococcus
Clostridiales
Catabacteriaceae
Clostridium
Clostridiales incertae sedis
Peptoniphilus
Clostridiales Family XIII. Incertae Sedis
Lachnospiraceae
Blautia
Lachnospiraceae
Coprococcus
Dorea
Eubacterium
Lachnobacterium
Lachnospira
Roseburia
Lachnospiraceae
Peptococcaceae
Ruminococcaceae
Ruminiclostridium
Acetivibrio
Eubacterium
Faecalibacterium
Oscillospira
Ruminococcus
Acidaminococcus
Dialister
Phascolarctobacterium
Veillonella
Rubrivivax
Alcaligenaceae
Oxalobacter
Bilophila
Desulfovibrio
Campylobacteraceae
Enterobacteriaceae
Escherichia
Erysipelotrichaceae
Erysipelotrichaceae
Holdemania
Akkermansia
▸ 益生元调节
施用低聚半乳糖(GOS)后,R.gnavus丰度下降。
龙舌兰菊粉,3周,随机对照试验,交叉试验,R.gnavus减少。
玉米可溶性纤维21g/d, 3周,随机对照试验,交叉试验,R.gnavus减少。
尽管活泼瘤胃球菌(Ruminococcus gnavus)是人类肠道微生物群的重要组成部分,通常在健康个体的肠道中广泛存在,但研究表明,其丰度的异常升高可能与多种疾病的发生和发展密切相关。这些疾病不仅包括肠道相关疾病,如炎症性肠病(IBD)、肠易激综合征(IBS)和结直肠癌,还涉及非肠道相关疾病,如神经发育障碍、神经系统疾病、代谢性疾病以及免疫系统紊乱等。
例如,除了最近《Nature Medicine》揭示活泼瘤胃球菌可通过苯丙氨酸脱羧酶及其代谢产物苯乙胺驱动肝性脑病,为肝性脑病提供了潜在诊疗靶点。 今年江南大学王鸿超团队基于机器学习识别关键菌群,发现肥胖个体中肠道共生菌活泼瘤胃球菌的丰度增加,且与临床指标显著相关,且通过调节胆汁酸代谢(如促进次级胆汁酸的生成)对宿主代谢产生不利影响,间接阻碍了体重的下降;并可能导致肝脏损伤。
因此,监测和预防活泼瘤胃球菌丰度的异常升高对于维持肠道菌群平衡和降低疾病风险具有重要意义。然而,要实现这一目标,需要建立可靠的健康人群和疾病人群的肠道微生物数据库,以明确健康状态下该菌的正常丰度范围及其在疾病状态下的异常变化边界。这些数据库应包括不同年龄、性别、生活方式和地理区域的健康人群数据,同时结合疾病人群的微生物组特征,明确活泼瘤胃球菌的丰度变化与疾病的关联模式。通过这些数据的积累和分析,不仅可以更准确地识别活泼瘤胃球菌的异常丰度阈值,还能为个性化的肠道健康管理和疾病预防策略提供科学支持。
主要参考文献
Crost EH, Coletto E, Bell A, Juge N. Ruminococcus gnavus: friend or foe for human health. FEMS Microbiol Rev. 2023 Mar 10;47(2):fuad014.
Juge N. Microbe Profile: Ruminococcus gnavus: the yin and yang of human gut symbionts. Microbiology (Reading). 2023 Aug;169(8):001383.
Grahnemo L, Nethander M, Coward E, Gabrielsen ME, Sree S, Billod JM, Engstrand L, Abrahamsson S, Langhammer A, Hveem K, Ohlsson C. Cross-sectional associations between the gut microbe Ruminococcus gnavus and features of the metabolic syndrome. Lancet Diabetes Endocrinol. 2022 Jul;10(7):481-483.
Henke MT, Kenny DJ, Cassilly CD, Vlamakis H, Xavier RJ, Clardy J. Ruminococcus gnavus, a member of the human gut microbiome associated with Crohn’s disease, produces an inflammatory polysaccharide. Proc Natl Acad Sci U S A. 2019 Jun 25;116(26):12672-12677.
Titécat M, Wallet F, Vieillard MH, Courcol RJ, Loïez C. Ruminococcus gnavus: an unusual pathogen in septic arthritis. Anaerobe. 2014 Dec;30:159-60.
de la Fuente-Nunez C, Meneguetti BT, Franco OLet al. Neuromicrobiology: how microbes influence the brain. ACS Chem Neurosci. 2018;9:141–50.
Fan X, Chen Y, Liu Yet al. First case of bloodstream infection caused by Ruminococcus gnavus in an 85 year old man in China. Lab Med. 2022;53:e36–9.
Hall AB, Yassour M, Sauk Jet al. A novel Ruminococcus gnavus clade enriched in inflammatory bowel disease patients. Genome Med. 2017;9:103.
谷禾健康
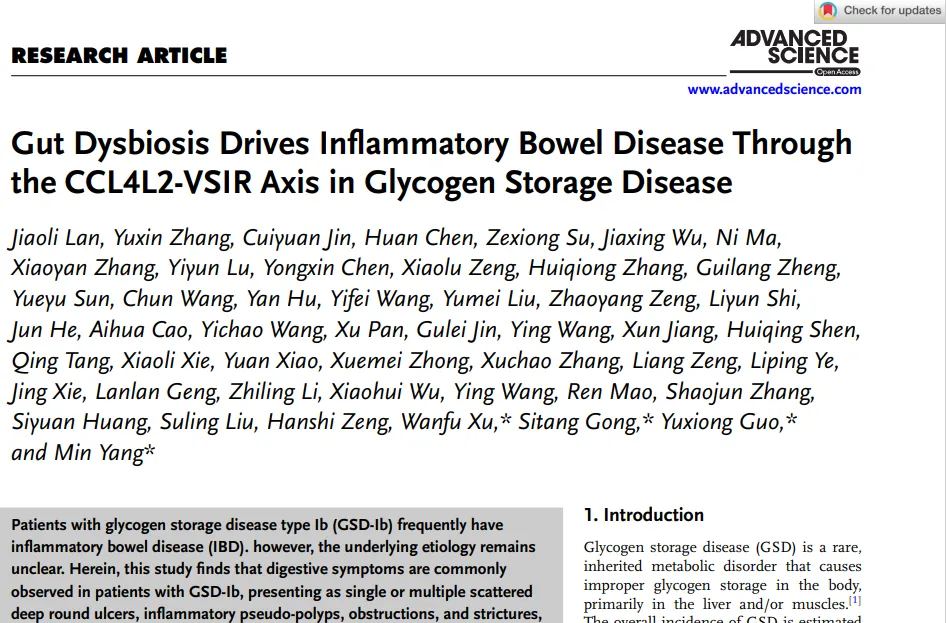
2024年6月19日,广东省人民医院儿科杨敏团队取得了一项备受瞩目的成果。该团队关于“肠道菌群失调通过糖原贮积病中的 CCL4L2-VSIR 轴引发炎症性肠病”,在国际著名期刊《Advanced Science》(影响因子IF=15.1)发表,针对这一通路不仅可以为 GSD 患者提供有益的治疗,还可以为结肠炎和其他形式的 IBD 患者提供有益的治疗。
谷禾健康技术团队参与并支持本研究的菌群测序和分析部分。
这一突破性研究为糖原贮积病及其相关并发症的治疗提供了新的视角,这也是我国儿科在罕见病领域的研究中取得的重大突破。
糖原贮积病(GSD),是一类由于先天性酶缺陷所造成的糖原代谢障碍疾病,多数属常染色体隐性遗传,发病因种族而异。该病类型多样,其中GSD-Ib型患者常伴有炎症性肠病。
在GSD-Ib型患者中,肠道菌群失调通过CCL4L2-VSIR轴影响炎症性肠病(IBD)。研究发现,与典型IBD不同,GSD-Ib患者展现出独特的消化道症状和肠道菌群特征。
肠道菌群失调主要由特定病原菌引起,导致肠道巨噬细胞过度激活,CCL4L2-VSIR轴的过度激活促进上皮细胞特定基因的表达,从而推动IBD的进展。
研究结果表明,靶向肠道菌群失调或CCL4L2-VSIR轴可能成为治疗GSD相关IBD的潜在策略。
糖原是肝脏和骨骼肌中储存的葡萄糖形式,其分解提供稳定的葡萄糖供应。当特定酶的活性缺失时,会导致糖原积累,进而影响组织的功能,导致一系列健康问题,包括低血糖、肌肉痉挛、疲劳、肝脏肿大等。
糖原贮积病的类型多样,根据受影响的酶和组织不同,可以分为几种主要类型。例如:
糖原贮积病的治疗主要是通过调节血糖水平和预防低血糖来管理。对于GSD-Ia和GSD-Ib,过去十多年的治疗方法包括间歇性未煮玉米淀粉或通过胃管给予夜间葡萄糖输注。给GSD-III患者高蛋白饮食,以增加儿童的生长速率。
GSD不仅影响儿童,成人也可能受到影响。未经最佳终身饮食葡萄糖治疗的成人GSD患者的长期预后不佳,可能会出现多种并发症,成人GSD患者常见的并发症包括骨质疏松症和骨折、肾结石、肾盂肾炎等。
▼
正常情况下,人体摄入的碳水化合物会被转化为葡萄糖,一部分葡萄糖会被立即利用以提供能量,而多余的葡萄糖则会在肝脏和肌肉等组织中合成糖原储存起来。当身体需要能量时,糖原又会分解为葡萄糖以供使用。
然而,在糖原贮积病患者中,由于参与糖原合成或分解的某些酶存在缺陷,导致糖原的合成、分解或储存出现异常,从而引起一系列的健康问题,包括低血糖、肌肉痉挛、疲劳、肝脏肿大等。
这类疾病有一个共同的生化特征,即是糖原贮存异常,绝大多数是糖原在肝脏、肌肉、肾脏等组织中贮积量增加。
▼
糖原贮积病是一种罕见病,总体发病率相对较低,但具体的发病率因不同类型的糖原贮积病而有所差异。
《世界胃肠病学杂志》资料显示,发病率约为20000-43000名新生儿中的1人。
由于其症状的多样性和隐匿性,一些病例可能未被准确诊断,实际的发病率可能被低估。
为了调查中国大陆GSD的流行病学和临床特征,杨敏及其团队进行了两项大型多中心研究,并通过问卷调查报告了2020年10月至2021年6月的209例GSD病例(如图)。
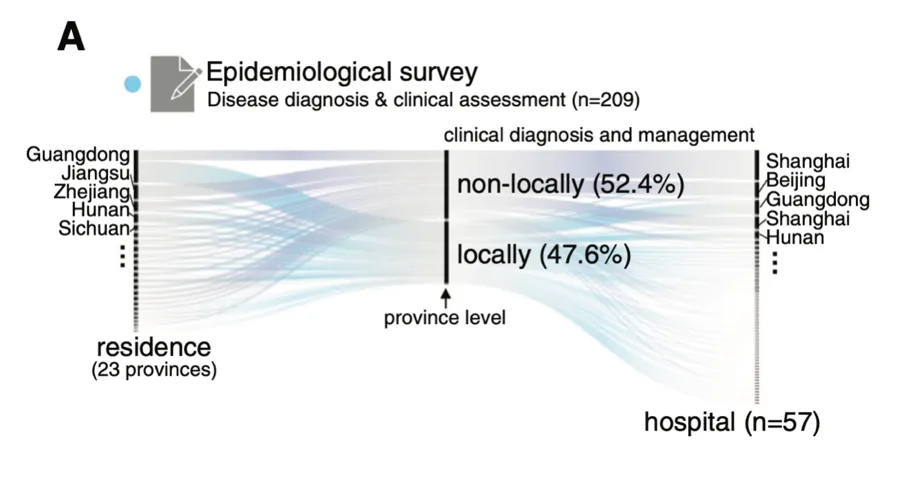
关于患者的就医情况,其中最显著的一个特点是超半数家庭(52.4%)为“省级”外来病例,就医的医院主要来自相对发达地区。且就诊地主要集中在上海、北京、广东等医疗资源相对发达的城市。
▼
糖原合成和分解代谢中所必需的各种酶至少有8种,由于这些酶缺陷所造成的临床疾病有15型,其中:
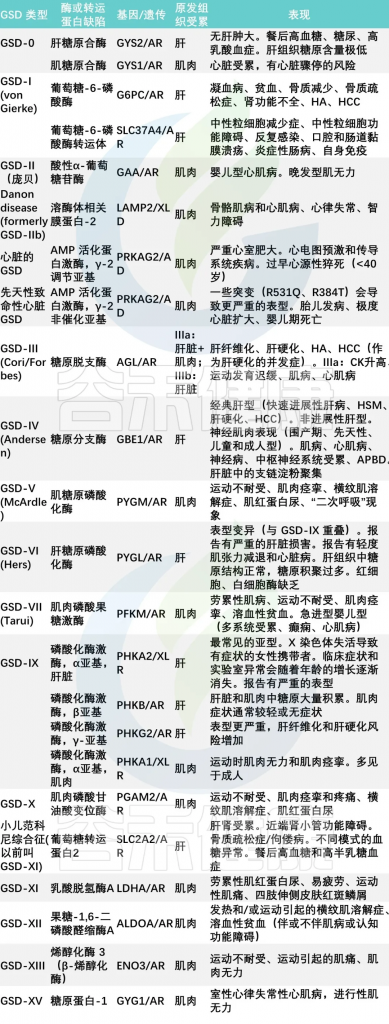
doi: 10.3748/wjg.v29.i25.3932
杨敏团队的调查研究中,主要包括6种类型的GSD,即:
其中最常见的是I型(66.9%)。
▼
不同类型的糖原贮积病临床表现各异,但常见的症状包括:
低血糖、肝肿大、酸中毒(乳酸性酸中毒)、高脂血症、高尿酸血症、疲劳、肌肉无力等。
由于糖原无法正常分解为葡萄糖,患者在空腹或长时间运动后容易出现低血糖症状,如头晕、乏力、出汗、心慌等。
糖原在肝脏中过度积累,导致肝脏体积增大。
长期的低血糖和代谢紊乱可能影响儿童的生长发育,导致身高、体重增长缓慢。
某些类型的糖原贮积病会影响肌肉功能,表现为肌肉无力、疼痛、痉挛等。
如Ⅱ型糖原贮积病可能导致心脏肥大、呼吸肌无力等,严重影响心肺功能。
其中:
口疮性口炎、肛周病变、胃肠炎、呼吸道感染和皮肤感染等症状在I型GSD中更常见;
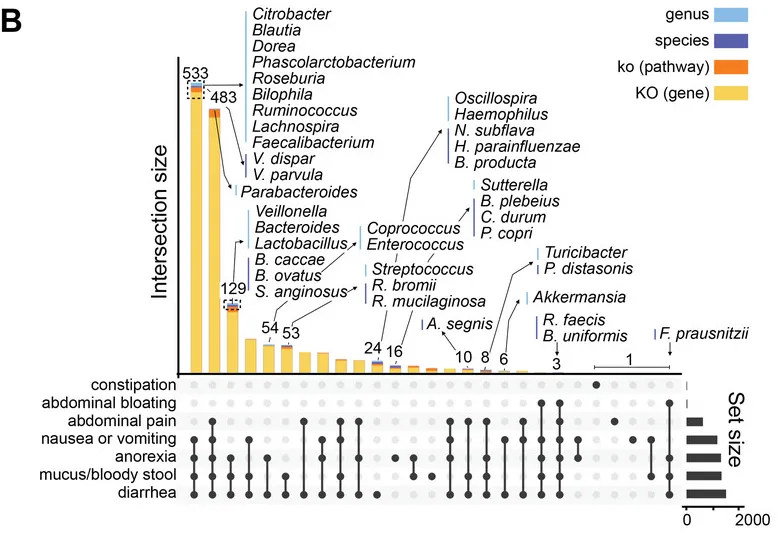
厌食、呕吐、腹泻、粘液/血便、腹痛和腹胀是 GSD 患者常见的胃肠道并发症,尤其是在 GSD-Ib 组(77.8%)。
造成患者家庭问诊困难的一个主要原因是该疾病表型的复杂,例如下图:
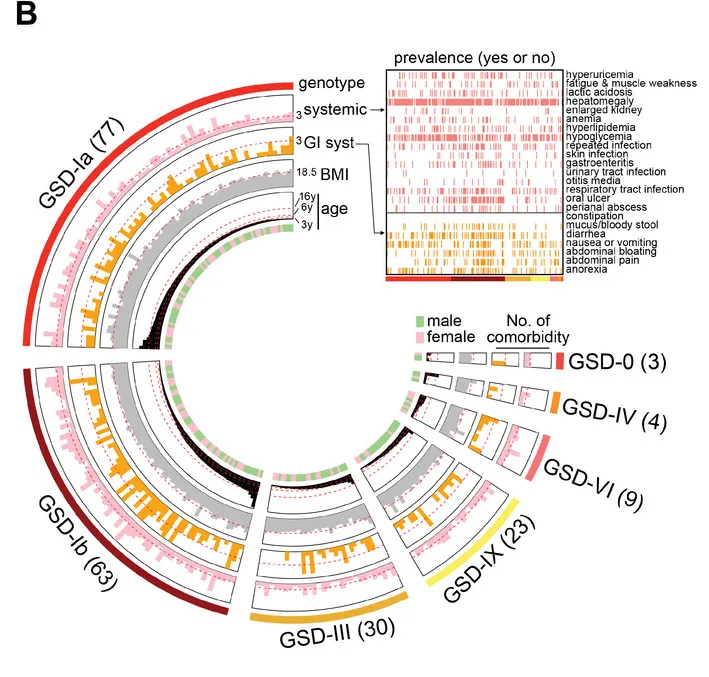
一种奇怪的糖原贮积病亚型:许多GSD-lb患者也患有慢性 IBD
杨敏教授表示,他们关注 GSD相关IBD 已有近10年了。多中心内镜监测研究中,他们招募了 32 名 GSD 患者。这些患者在内镜检查期间表现出活动性胃肠道症状。在这 32 名患者中,27 名患有 GSD-Ib,25 名最初诊断为 IBD。
其中GSD-Ib型患儿消化道症状比例最高(77.8%)且最为特殊,表现为单个或多发散在深圆形溃疡、炎性假息肉、梗阻和狭窄(如下图)。
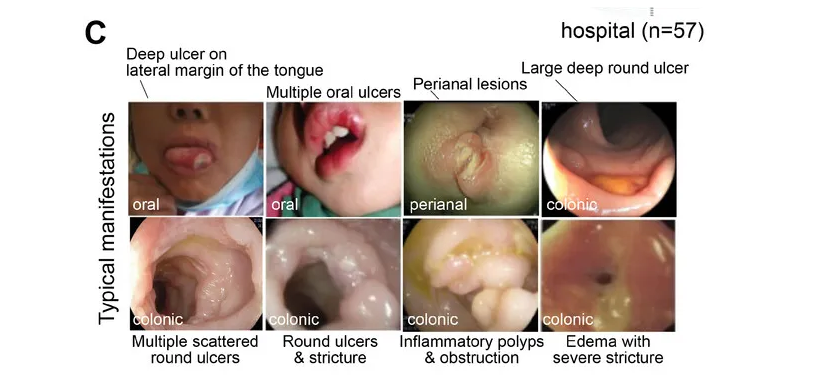
目前人们对 GSD-lb 中 IBD 的发病机制和发病原因知之甚少,超过 70% 的病例会出现严重的消化道症状,而这种症状在其他疾病亚型中偶尔才会出现。
如果不具体了解这些机制以及免疫系统与肠道微生物群之间的关系,科学家将无法开发出针对与 GSD 相关的 IBD 症状的有效治疗方法或干预措施。杨敏及其团队希望改变这一现状,开始了他们的实验探索过程。
▼
为了探究GSD群体消化系统异常,特别是IBD高发的原因,杨敏及其团队在全国23个省份招募了150名GSD患者(共涵盖Ia、Ib、III、IX、VI、IV及0型共7种类型)采集粪便样本, 327个健康对照者的粪便样本。
注:这327个对照样本包括:137 名家庭对照者和 190 名在山东、浙江、湖南等地收集的无关健康对照者。
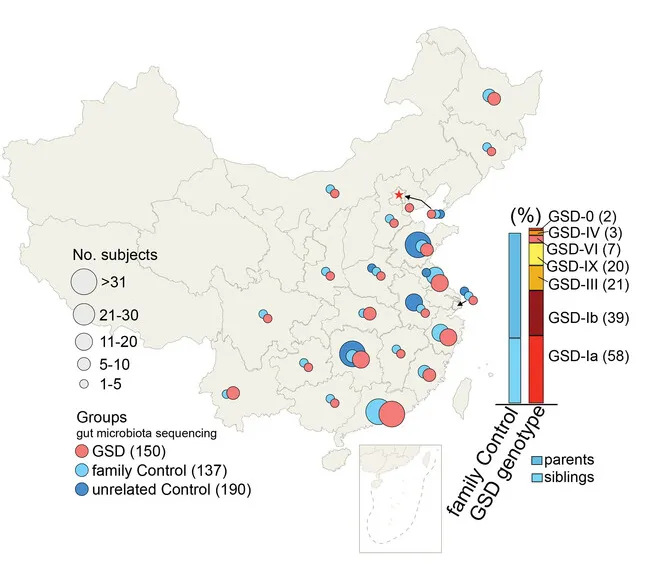
GSD基因型是肠道菌群的主要影响因素
肠道菌群受多种因素影响,包括饮食、地域和医疗条件等。
通过结合个人临床信息与肠道菌群数据的EnvFit分析发现(如下图),共有45个个人因素与肠道菌群的变异显著相关,如疾病情况(基因型)、家庭因素、年龄、身高体重、共患病等等。
值得注意的是,在这个队列中,GSD基因型主要影响肠道菌群组成。总体而言,家庭因素(家庭组配对比较)和居住地区是影响肠道菌群组成的第二和第三重要因素。
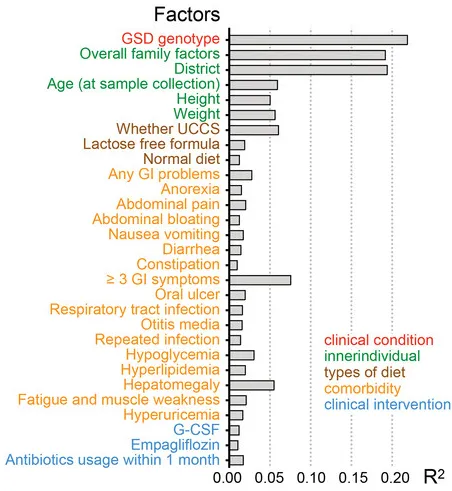
这在肠道菌群研究中颇为少见,因为多数研究认为地域因素极大且显著地影响个体菌群构成。这说明,特殊的基因型对于塑造个体肠道菌群构成起到决定性作用。
具体而言,研究人员将患者分为三组:
GSD-Ia、GSD-Ib、GSD-no IaIb
▼
GSD引起了个体肠道菌群多样性显著降低(下图H)及潜在致病菌显著升高(下图G),特别是GSD-Ia和GSD-Ib。这些肠道菌群的变化在校正性别、年龄、BMI和地域等因素后,仍然存在。
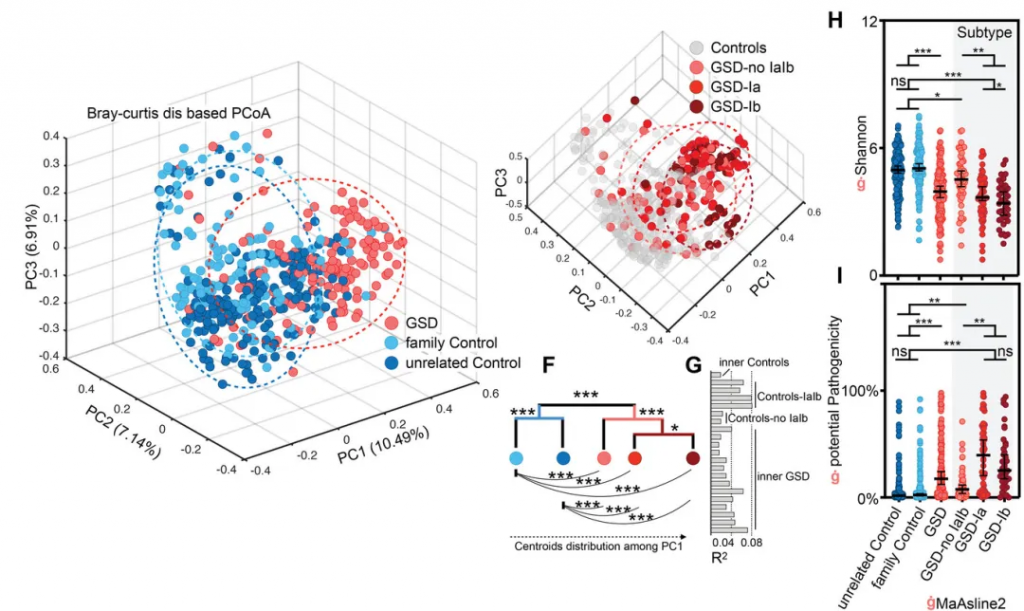
厚壁菌门和拟杆菌门仍是主要菌群;但变形菌门和放线菌门的比例显著增加。
GSD 患者共有31个属发生显著改变。其中18个属减少,而其余13个增加。这31个属中28个属在校正掉性别、年龄、BMI和地域等因素影响后,仍与GSD显著相关(下图D)。
有22物种的丰度和GSD显著关联(下图E),其中10 个增加和12个降低。
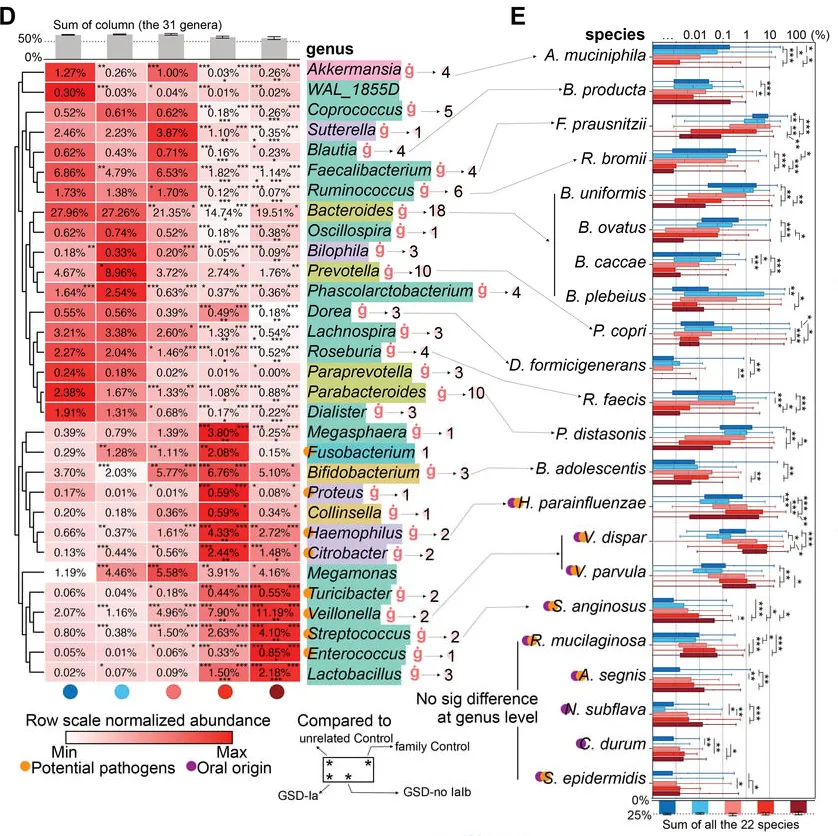
这31个显著改变的属的总丰度在不同分组人群中的总占比达到60-70%,种水平则为~25%,表明这些GSD相关的属种变化,是肠道菌群构成主体的紊乱。
▼
GSD-Ia和GSD-Ib患者表现出更严重的菌群紊乱,特别是那些最常见、功能性的微生物类群在其肠道内丢失,例如下列菌群在GSD-Ia和-Ib几乎完全耗尽:
丁酸可增强上皮氧合,有利于结肠中的低氧微环境并抑制病原体定植。然而,主要丁酸生产菌,如拟杆菌属、粪杆菌属和瘤胃球菌,以及相关代谢途径在GSD中显著降低,这可能导致兼性厌氧病原菌的延伸。
具体到每个菌来说:
AKK菌与肠道屏障的维持和抗炎作用有关,其减少可能会削弱肠道屏障,增加肠道炎症的风险,从而可能与IBD症状的出现有关。
粪杆菌参与肠道内的发酵过程,对维持肠道健康和免疫功能有重要作用。在糖原贮积病患者中,由于糖原代谢异常可能影响了肠道环境,进而影响了粪杆菌的定殖和功能,导致其数量减少。这可能会减少短链脂肪酸的产生,影响肠道健康。
拟杆菌在肠道内参与碳水化合物的分解,产生短链脂肪酸,糖原贮积病患者拟杆菌的减少可能导致肠道炎症反应加剧,与IBD症状的出现有关。
瘤胃球菌是产生短链脂肪酸的重要菌群,对肠道健康和宿主能量代谢有重要作用。瘤胃球菌的减少可能会导致短链脂肪酸的产生下降,影响肠道屏障功能和抗炎作用,从而可能与IBD症状的出现有关。以动物为基础的饮食会增加有害菌Ruminococcus gnavus。
GSD患者中存在口腔源的潜在病原体激增,例如:
口腔中的致病菌可以在肠道中定植和繁殖,说明肠道为这些菌群的生长繁殖提供了条件和环境。
链球菌,已被证明可通过GasderminA依赖性细胞焦亡诱导肠道损伤;可能通过产生超抗原等物质激活宿主T细胞免疫反应进而引发肠道炎症。
肠球菌的成员已显示出促炎作用;肠球菌可以通过分泌金属蛋白酶分解上皮钙黏蛋白破坏肠屏障。
韦荣氏球菌属在IBD中延伸,细小病毒通过产生硝酸盐诱导炎症。韦荣氏球菌属和链球菌的组合抑制了IL-12p70的生物合成,随后增强了IL-8、IL-6和TNFα的炎症反应。
菌群该定植时未定植,该退出时却长期占据
值得注意的是,双歧杆菌、韦荣球菌和乳杆菌这些本应该在健康儿童生命早期保持较高比例的细菌,在GSD患者的肠道中扩张,并且这些细菌在 GSD 患者的整个童年和成年期都会扩增,这可能抑制了其他正常菌群的定植。
▼
GSD患者肠道菌群发育落后于实际年龄
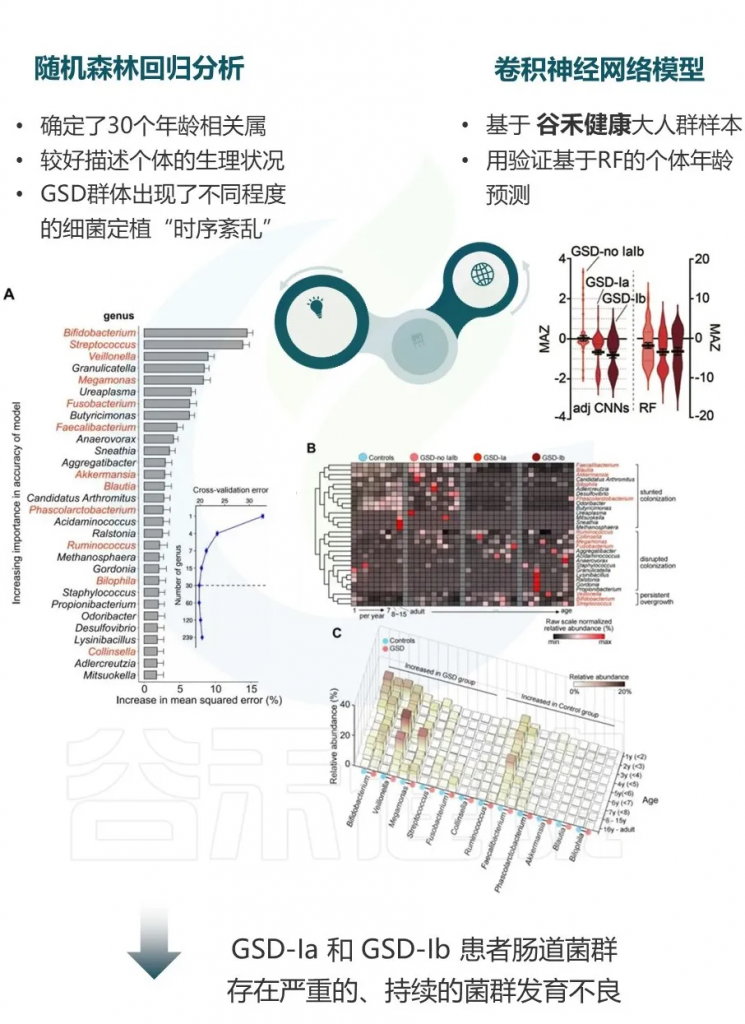
使用微生物组年龄Z分数(MAZ)评估菌群发育状态,随机森林回归和调整的深度神经网络分析均显示GSD患者的MAZ显著降低,特别是在GSD-Ia和Ib患者中。
这表明GSD患者的肠道菌群发育落后于实际年龄,呈现发育延迟状态。
▼
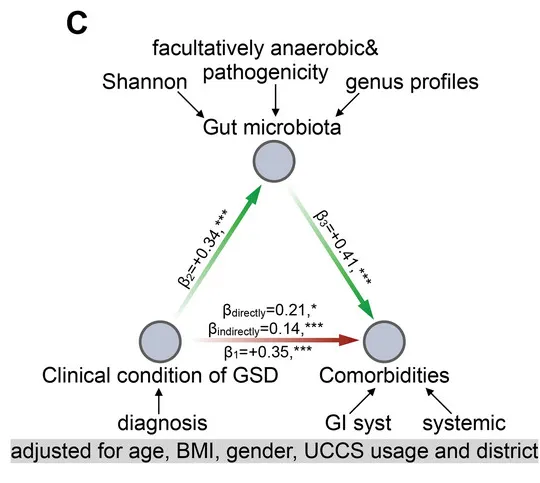
从数据分析的角度,研究团队进一步分析了GSD患病情况、共患病与肠道菌群紊乱的中介关系。
他们用最具代表性的肠道微生物特征和临床元数据构建了一个中介模型,在校正年龄、性别、BMI、地域及特殊治疗性饮食(生玉米淀粉)的影响后,肠道菌群仍然是GSD背景下,患者消化道异常的显著中介因子(下图)。说明GSD会通过影响肠道菌群构成最终造成消化道异常。
GSD 中这些细菌可能相互依赖资源和生存,形成一个复杂的相互支持网络,肠道菌群失调可能通过细菌的“群体犯罪”引起 GSD 患者的肠道上皮功能障碍。
下面我们来看一下该研究的另一个重要内容——肠道微生物群和免疫细胞之间的“串扰”。
▼
为了明确GSD相关的肠道菌群紊乱,如何引起个体IBD表性的产生。研究者们采集3名GSD-Ib患者的结肠粘膜组织(下图G),并使用单细胞测序技术分析患者结肠粘膜单细胞层面的转录水平变化。通过转录水平注释发现,相较于健康人、典型IBD和结肠炎的肠粘膜组织,GSD-Ib患者肠粘膜上有非常高的巨噬细胞聚集(下图H)。
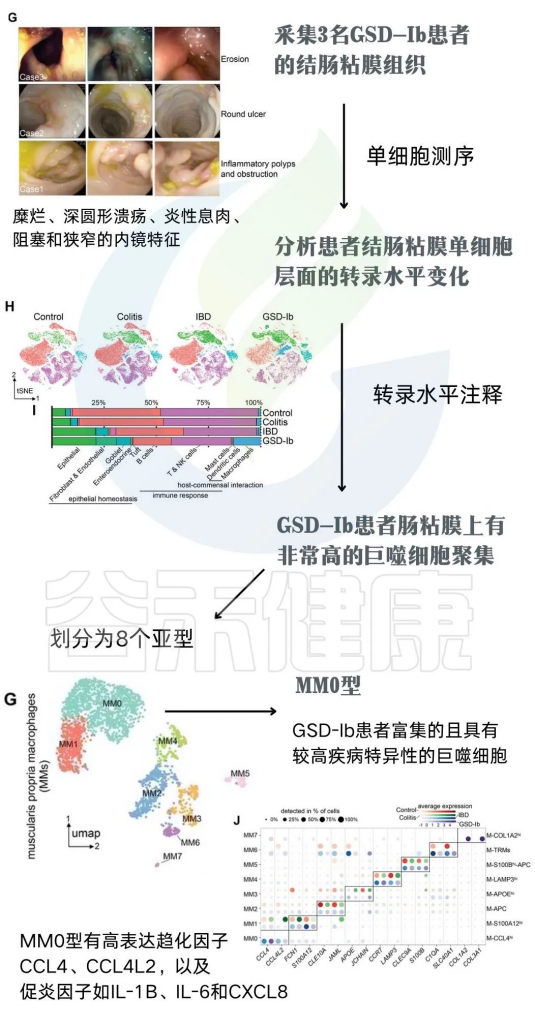
注:巨噬细胞中差异表达基因的KEGG通路注释显示,GSD-Ib中调节抗菌体液免疫反应和趋化因子介导的信号通路的基因集显著富集。GSD-Ib组中上调的基因主要参与环境信息处理和人类疾病。
“
更深入的分析确定了一种巨噬细胞亚型(MM0)的重要性,这种亚型产生一种名为CCL4L2的趋化因子,负责激活其他免疫细胞对抗有害细菌的生长。
虽然CCL4L2的自然功能通常是保护性的,但杨敏及团队怀疑,由于GSD-Ib患者相关肠道细菌的存在,CCL4L2的过度或失调刺激可能是他们出现IBD症状的可能原因。
这一点最初在实验室中得到了支持,其中用有害细菌感染的细胞获得的细胞培养基处理的巨噬细胞,比用对照培养基处理的巨噬细胞更加“激活”。
下面我们来看一下他们选用了哪些菌群进行相关实验,来刺激巨噬细胞:
▼
研究人员选择了三种GSD相关菌群来刺激巨噬细胞,即:
暴露于粪肠球菌、小弧菌和咽峡炎链球菌以及混合感染 (EVS) 的巨噬细胞中 CCL4L2 的表达在 mRNA 和蛋白质水平上显著增加,但不影响 IL-1 β和 IL-6 的表达。
来自EVS感染的条件培养基(CM)与对照组相比,诱导了显著的巨噬细胞迁移趋化性,而这种趋化性部分被CCL4L2中和所减弱。
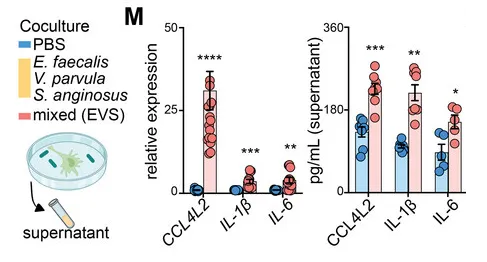
因此,是特定的肠道病原菌(如E. faecalis、V. parvula、S. anginosus)引发了CCL4L2的高表达,那么具体是如何影响炎症性肠病的进展?我们接着看。
“
然后,团队在从GSD-Ib患者取得的活检样本中寻找CCL4L2,并发现CCL4L2蛋白与一种叫做VSIR的受体结合,这种受体存在于肠道细胞壁中。
在IBD的小鼠模型中也发现了类似的结果,科学家们发现与健康对照组相比,巨噬细胞的水平更高,并且在用一种旨在抑制VSIR的抗体处理后,他们发现小鼠的症状加重了。
巨噬细胞通过CCL4L2-VSIR配体-受体信号与肠道上皮细胞相互作用,以促进损伤修复。
具体研究如下:
调节核糖体、氧化磷酸化途径和抗病原体反应的基因集在GSD-Ib上皮细胞中特异性富集。
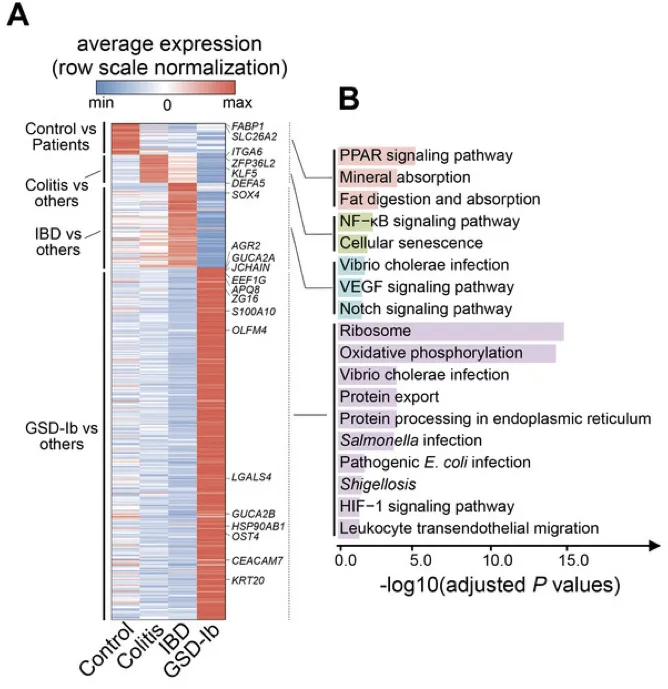
上皮细胞中典型的差异表达基因是AQP8、ZG16、GUCA2C、SLC26A3、AGR2,它们负责吸收、分泌、代谢、上皮屏障完整性、pH稳态、粘液屏障功能。
▼
免疫荧光染色显示GSD-Ib患者肠道组织中CCL4L2和VSIR的显著共定位,进一步验证了CCL4L2在巨噬细胞中的高表达及其与VSIR的相互作用。
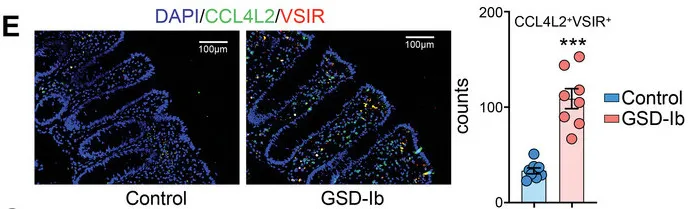
CCL4L2与其受体VSIR形成的CCL4L2-VSIR轴主导参与了MM0型巨噬细胞与其他类型细胞交互,特别是OLFM4+上皮细胞(这类细胞是GSD特异性增加的,同时也被报道在克罗恩病中较高)。
预测MM0巨噬细胞与其他细胞类型之间的相互作用
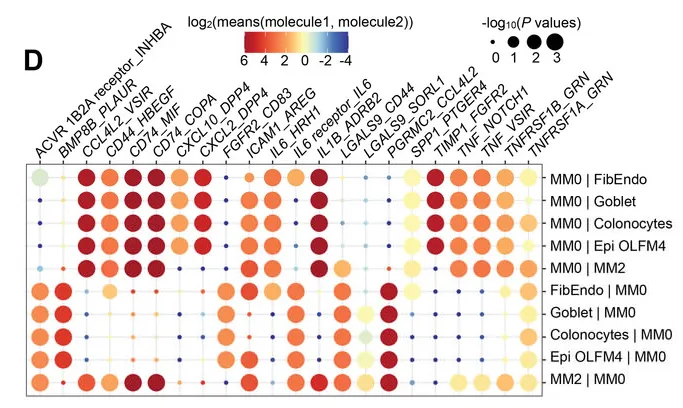
而这些受体细胞的基因表达情况,决定了患者肠道组织的疾病发展方向,如AGR2、ZG16、MUC2等。
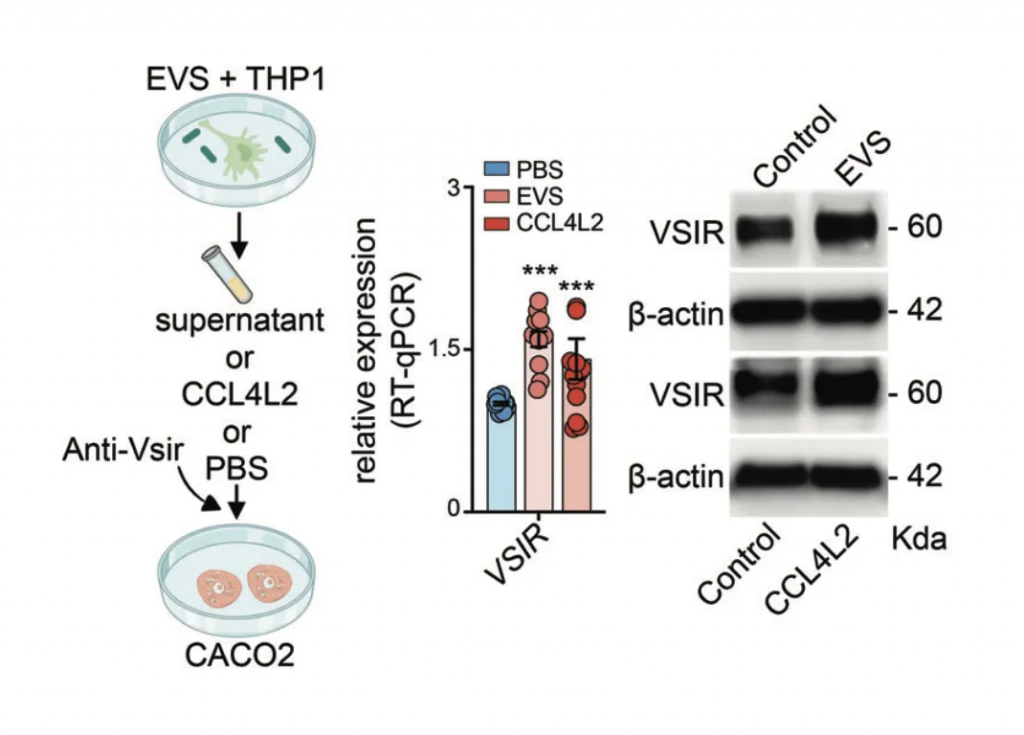
表明GSD相关的肠道菌群紊乱,通过引起肠上皮巨噬细胞高表达趋化因子CCL4L2,激活其他下游细胞膜蛋白VSIR表达,从而引起了GSD独有的消化系统IBD表型。这个现象进一步在C57BL/6小鼠中得到验证。
▼
研究人员在C57BL / 6小鼠中进行了选择性细菌移植,通过口服灌胃的方式将EVS移植到小鼠体内,并用DSS诱导结肠炎。研究发现,抗生素治疗显著降低了EVS灌胃诱导的小鼠血清CCL4L2水平,而抗VSIR则显示出完全相反的趋势。
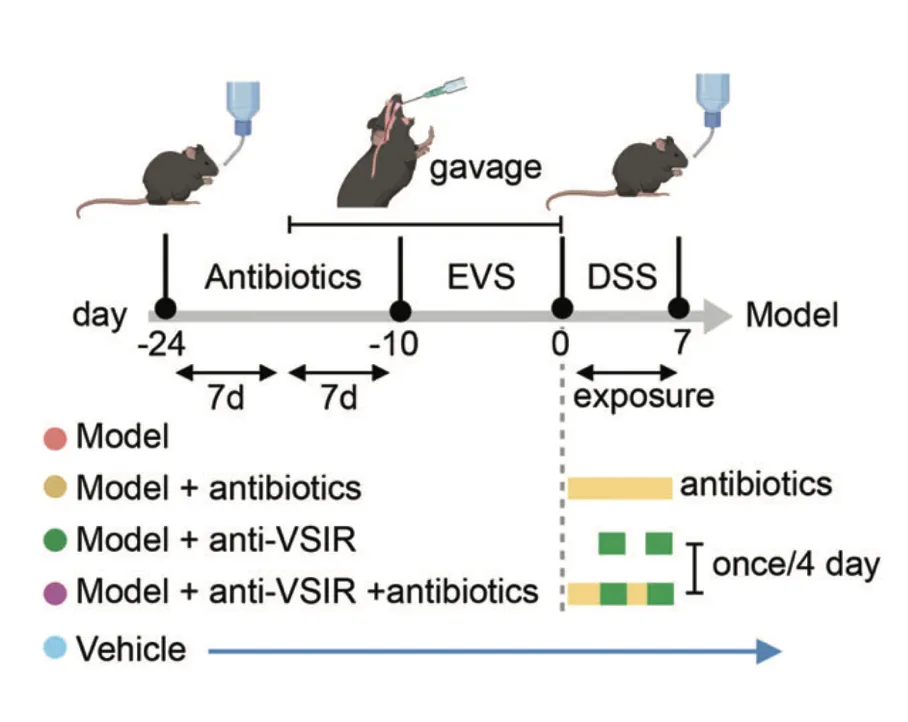
免疫荧光染色显示,模型组中MM0巨噬细胞增强,但在给予抗生素或抗VSIR注射后减少,这进一步导致模型组中肠上皮细胞的MUC2、AGR2和ZG16表达显著下调,引发粘膜损伤。
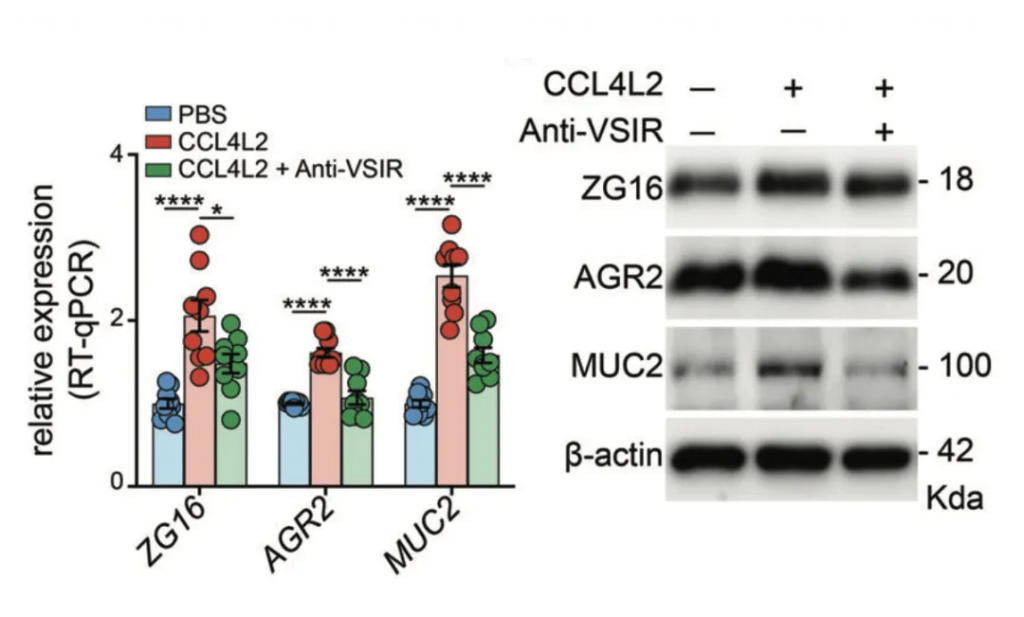
研究结果表明,EVS 增强的 MM0 巨噬细胞可以通过调节 CCL4L2-VSIR 轴来介导结肠肠上皮稳态。因此,靶向CCL4L2-VSIR通路可用于结肠炎和IBD的广泛应用。
肠道驻留免疫细胞和上皮之间的串扰,对于胃肠道稳态、抗原致敏调节、预防感染和 IBD 发展至关重要。在该研究中 GSD相关IBD 与典型的 IBD 相比具有不同的特征,特别是复杂的内镜表现及其特殊的解构:大量巨噬细胞积聚和上皮细胞增殖。
从病因上讲,肠道致病菌激活粘膜巨噬细胞导致胃肠道内形成炎症环境。在 GSD-Ib 中,一群独特的巨噬细胞由致病菌诱导,并表达高水平的趋化因子CCL4L2。
关于CCL4L2的有益方面:
潜在有害方面:
值得注意的是,CCL4L2-VIR通路的激活可能促进严重细胞因子风暴中的T细胞耗竭,这与新冠肺炎的不良预后有关。
靶向CCL4L2-VSIR可以抑制各种炎症性疾病、自身免疫性疾病和肿瘤转移。在这里,研究人员揭示了胃肠道中CCL4L2-VSIR轴的异常激活,最终驱动GSD-Ib中的非典型IBD。该发现为诊断和治疗GSD-Ib以及潜在的GSD相关IBD引入了一个新的靶点,并为VSIR相关研究提供了证据。
总的来说,这项研究证实了在糖原贮积病群体中独有的肠道菌群紊乱,即:
而这样的肠道菌群紊乱会引起个体结肠巨噬细胞高表达CCL4L2,并通过其受体蛋白VSIR介导上皮细胞的异常基因表达,最终造成GSD相关的IBD表型。
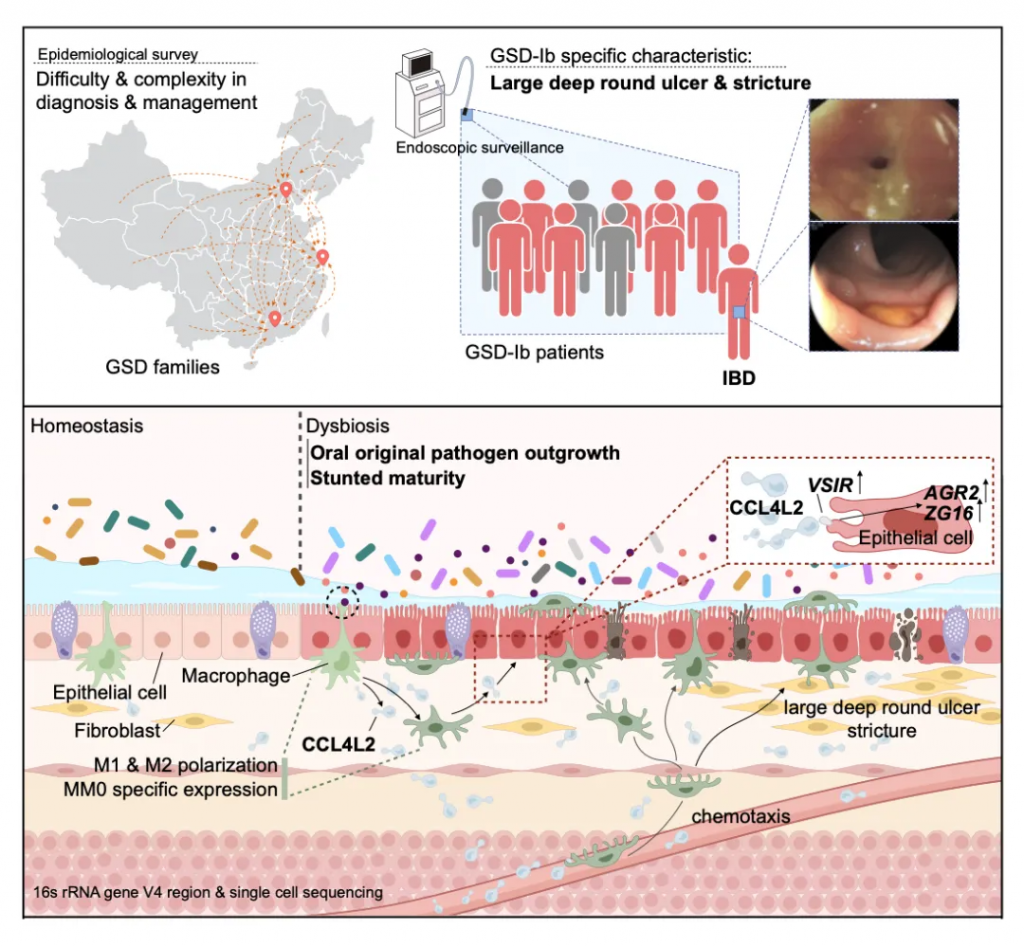
该研究的意义及未来方向:
该研究通过识别GSD-Ib与IBD之间的特定生物学联系,推动了精准医疗在代谢性疾病和消化系统疾病中的应用。
目前杨敏团队正在研究 CCL4L2-VSIR 通路的作用机制,并将探索其在患者治疗中的潜力。该团队预计,针对这一通路不仅可以为 GSD 患者提供有益的治疗,还可以为结肠炎和其他形式的 IBD 患者提供有益的治疗。
CCL4L2-VSIR轴的发现也可能促进新药开发,特别是针对GSD-Ib相关IBD的治疗。
这些研究结果也可应用于个性化治疗方案(基于肠道菌群特征),为患者提供更有效的治疗选择,有助于改善GSD-Ib患者及更广泛消化系统疾病患者的生活质量。
主要参考文献
Lan J, Zhang Y, Jin C, Yang M et al., Gut Dysbiosis Drives Inflammatory Bowel Disease Through the CCL4L2-VSIR Axis in Glycogen Storage Disease. Adv Sci (Weinh). 2024 Jun 18:e2309471.
Gümüş E, Özen H. Glycogen storage diseases: An update. World J Gastroenterol. 2023 Jul 7;29(25):3932-3963.
Hannah WB, Derks TGJ, Drumm ML, Grünert SC, Kishnani PS, Vissing J. Glycogen storage diseases. Nat Rev Dis Primers. 2023 Sep 7;9(1):46.
Zhong J, Gou Y, Zhao P, Dong X, Guo M, Li A, Hao A, Luu HH, He TC, Reid RR, Fan J. Glycogen storage disease type I: Genetic etiology, clinical manifestations, and conventional and gene therapies. Pediatr Discov. 2023;1(2):e3.
Wang Y, Liu H, Dong F, Xiao Y, Xiao F, Ge T, Li D, Yu G, Zhang T. Altered gut microbiota and microbial metabolism in children with hepatic glycogen storage disease: a case-control study. Transl Pediatr. 2023 Apr 29;12(4):572-586.
谷禾健康
人类微生物组包含约 1000多 个常见物种,微生物细胞数量达 10-100 万亿个。微生物大多数遗传库分布在人类胃肠道内,与许多生理过程的发育和功能有内在联系,例如,肠道屏障完整性和稳态、营养、免疫和神经心理行为等。
人类肠道的菌群失调(即共生肠道微生物群的变化对宿主健康产生影响)通常与一系列疾病相关,其中许多疾病无法使用完善的医疗方案进行治疗。
在这种情况下,将健康捐赠者的粪便物质直接移植到受体的胃肠道中(称为粪便微生物群移植,简称粪菌移植,FMT)代表了一种操纵受体微生物群并赋予健康益处的治疗方法。许多国家食品和药物管理局最近的批准表明,粪菌移植和治疗性益生菌鸡尾酒疗法目前正在扩大研究和应用领域。
这种方法成功的关键是能够在患病患者的胃肠道内重建并将肠道微生物群恢复到理想的健康状态。据报道,粪菌移植在临床中治疗艰难梭菌感染成功率接近 90%。
最近发表了几项通过粪便微生物移植(FMT)来治疗炎症性肠病(IBD),特别是溃疡性结肠炎的随机临床试验,但是研究设计存在重大差异。这些包括给药剂量、给药途径和频率、安慰剂类型和评估终点的差异。总体结果看起来很有前景,但它们高度依赖于捐赠者和接受者因素。
近日,来自意大利、法国、英国、美国等 25 名IBD、免疫学和微生物学领域专家多次召开会议,通过对当前可用和/或已发布的数据进行深入评估来制定基于IBD 中与 FMT 相关证据的指南。所有成员对声明进行评估和投票,最终形成全体共识会议并生成拟议指南。
声明包括:
这份共识目的是为使用 FMT 评估、管理和潜在治疗 IBD 制定基于共识的声明和建议,以实现标准化实践。
今天谷禾与大家分享该共识或指南内容,并结合以往研究结果和相关经验阐述说明。我们也相信,在临床研究中明确考虑供体和受体的原有肠道微生物生态原则可以更好地指导FMT试验的设计并有助于提高 FMT 的疗效。
★
生态学是一门核心学科,研究集中构建生物群落的过程和机制,并调节其在空间和时间上的变化。
虽然说,生态学和微生物学在研究复杂群落的方向经常会有交叉部分,但两者在历史上都是作为独立的科学学科发展起来的,在概念、术语、综合和理论的使用上往往有所不同。
临床研究中的 FMT,个体之间粪便物质的移植符合社区合并的概念。这个概念指的是:
整个生物群落及其环境的大规模混合
虽然在宏观生物生态学(即植物和动物)中构成罕见事件,但群落合并在微生物系统中很常见,实际上,群落经常作为一个单元迁移。
这一原则与 FMT 治疗相一致,尽管该术语似乎尚未在临床研究中得到很好的确立。然而,合并后群落重新排列的结果(即植入)更常用于跟踪 FMT 功效。
基于来自供体、FMT前、FMT后接受者的粪便微生物组的微生物菌群监测,才能更好的确定与较高供体菌株植入相关的最重要的临床变量,通过不同的上消化道和下消化道引入的混合途径(即通过胶囊、肠镜检查、鼻胃管、鼻十二指肠管或上内窥镜检查和结肠镜检查),单独或结合进行 FMT 给药,会导致 FMT 后供体菌株植入率更高。
这一发现支持了繁殖压力(即引入的个体数量与独立引入的数量的组合)对于在新环境中成功引入非本地物种的重要性。
发生这种情况主要是因为:
i)初始微生物物种种群的大小可以直接影响其在非本地环境中持续存在的能力
ii)即使是短暂的入侵者也会对微生物组产生影响,有时会促进其在后续环境中的引入入侵尝试(例如,重复入侵尝试的重要性)
其次,在 FMT 给药前接受抗生素的患者中,可能供体菌株植入率更高。已知抗生素的使用会导致肠道微生物群失衡(即非生物紊乱)。这种干扰降低了受体胃肠道微生物群的生物抗性,有利于随后的供体群落植入。重要的是,这个个别研究结果,在推广这一原则时需要谨慎,因为 FMT 之前的抗生素剂量、类型和时间都会导致与 FMT 最终结果的差异。
第三,患有传染病的患者在接受单途径 FMT 给药后,微生物组植入量更大。这与以下观点一致:驻留微生物组的先前不稳定(即,在这种情况下,生物干扰)也会对肠道生物抵抗力产生负面影响。特别是,胃肠道中非本地物种(例如感染期间的致病菌)的存在可以促进其他非本地物种的后续入侵。
★
粪便微生物群移植(FMT)被定义为将健康捐赠者的粪便输注到受体的胃肠道中,以治疗与疾病相关的肠道菌群失调。
根据几项随机对照试验和荟萃分析的报告,FMT是治疗复发性艰难梭菌感染的一种既定且高效的治疗选择,最终制定了国际指南,以标准化其使用艰难梭菌感染的可行治疗方式。
继成功治疗艰难梭菌感染后,FMT 也在炎症性肠病 (IBD) 患者中进行了研究,首先是在非随机研究中,随后在随机对照试验中,尽管 FMT 方案和程序存在显着差异,但两者均显示出有希望的结果。
然而,采用 FMT 治疗 IBD 受到一些限制,包括招募捐赠者、准备粪便材料、确定最佳给药途径以及缺乏明确和既定的监管框架。
解决这些问题的潜在策略包括识别和使用可持续、可重复和标准化的方案,最终目标是改变肠道微生物组的组成。因此,建立最佳的FMT整体框架对于IBD的未来管理具有重要意义。
▼
共识过程是按照以下步骤制定的:
确定成员
确定了 25 名共识成员,他们在微生物学、免疫学、FMT 和 IBD 领域拥有公认的专业知识,并全部参加了专家小组。
注:德尔菲法是在20世纪40年代由O.赫尔姆和N.达尔克首创,经过T.J.戈尔登和兰德公司进一步发展而成的。
德尔菲法作为一种主观、定性的方法,不仅可以用于预测领域,而且可以广泛应用于各种评价指标体系的建立和具体指标的确定过程。
分工作小组
根据个人专业知识,每位成员被分配到四个工作组之一:
每个工作组提出了一份关键问题清单,并制定了与指定主题相关的声明。对于每个关键问题,最佳现有证据是通过对相关文献进行系统审查而获得的。声明以专家意见 (EO) 的形式发布。
详细陈述已上传至在线投票系统(http://scott.armstrong.delphi.stlouisintegration.com/delphi2/),并分发给专家组。
专家评分
每轮审查后,都会收集、处理并与专家小组分享专家的答复。
对于每项陈述,专家们被要求对他们的同意程度进行评分:
如果至少 80% 的受访者对每项陈述表示强烈同意或同意保留意见,则达成共识。
未通过此门槛的声明将在后续轮次投票中进行修改和再次评级,直至达成共识。小组专家于 2022 年 6 月 25 日齐聚罗马,对总体声明进行完善和最终批准。
最终达成共识
经过三轮投票,最终的累积声明达成共识。第一轮和第二轮后,分别有67%和79%的陈述通过了80%的同意门槛,而第三轮后100%的陈述达到了目标水平。
★
声明 A1
IBD 的确切病因目前尚不清楚;然而,其发病机制是多因素的,受遗传易感性、宿主粘膜免疫反应和环境(包括饮食和肠道微生物群)的影响。
评论:
IBD,如克罗恩病 (CD) 和溃疡性结肠炎 (UC),是一种慢性、复发性消化道炎症性疾病,是由于遗传易感个体肠道免疫系统和肠道微生物群之间失去稳态而导致的。由于对肠道微生物群的耐受性失调或将微生物与底层组织分开的上皮屏障破坏,导致不适当的粘膜免疫反应,可能会导致 IBD 的发展或持续。
声明 A2
肠道微生物群的组成、相对丰度、多样性和功能的改变(即菌群失调)促进IBD的发生和进展。
评论:
越来越多的证据表明,肠道微生物组组成的不平衡或“生态失调”是促进 IBD 发展影响最大的环境因素之一,因为改变的微生物群与宿主的相互作用可以触发和促进免疫与 IBD 相关的改变。大量证据表明,IBD 患者肠道微生物组存在特定的共同改变,这些改变与许多功能受损相关,包括短链脂肪酸代谢、氨基酸生物合成、氧化应激调节和毒素,可以单独或共同促进 IBD 的发展。
声明 A3
溃疡性结肠炎和克罗恩病患者的肠道微生物组特别缺乏普拉梭菌,这种细菌因其潜在的抗炎特性而被认可。
关于普拉梭菌详见:
肠道核心菌属——普拉梭菌(F. Prausnitzii),预防炎症的下一代益生菌
评论:
越来越多的临床和实验数据表明,共生微生物群在维持人类和实验性 IBD 的炎症过程中发挥着关键作用。
一些报告显示,IBD 期间微生物多样性下降,尤其是厚壁菌门和拟杆菌门。有趣的是,厚壁菌门的成员普拉梭菌显着减少,并且具有公认的抗炎活性。
相反,活动性 IBD 中的变形菌和放线菌通常升高,以及特定的大肠杆菌菌株也如此。在这种情况下,肠道微生物组的成分在炎症性肠病中发挥着至关重要的作用,这可能代表了一种与细菌加工相关的疾病。因此,肠道微生物组和宿主免疫反应之间存在功能失调的关系,从而引发和维持 IBD 的慢性炎症。
声明 A4
IBD 患者感染艰难梭菌的风险高于一般人群。
评论:
IBD 特异性危险因素,例如免疫抑制、炎症的严重程度和扩展以及 IBD 中观察到的肠道菌群失调,被认为是IBD 患者艰难梭菌感染高风险的主要原因。
IBD 患者并发艰难梭菌感染会导致住院时间延长以及结肠切除率和死亡率增加。鉴于这种情况可能会危及生命的并发症,建议在 IBD 发作期间和早期治疗干预期间筛查艰难梭菌。
艰难梭菌的选择较高毒力、抗生素耐药性和反复感染率增加的菌株使得IBD 中艰难梭菌感染的治疗更具挑战性。因此,建议采用个体化治疗方法来控制IBD 发作期间的艰难梭菌感染。
★
声明 B1
适合 IBD 实验性 FMT 的供体应接受血液和粪便检测,测试符合目前通过 FMT 治疗艰难梭菌感染的国家和国际指南,并且一般用于临床实践。
评论:
以 FMT 为目的的供体筛查的主要原则是避免潜在的传染病传播。用于筛查艰难梭菌感染 FMT 的指定血液和粪便参数已在溃疡性结肠炎患者的多项随机对照试验中被证明是安全的。应提供包含待测试的强制性国际参数的列表,而其他参数则应取决于地理区域(例如,热带地区)、患者的医疗状况或捐赠者的病史(例如,粪便钙卫蛋白增加史)。
除了血液和粪便检测外,还应通过多项调查问卷监测总体健康状况、饮食和心理状态,以避免任何潜在的非传染性不良事件。
声明 B2
粪便捐赠应该是自愿的,并且应告知捐赠者捐赠的潜在风险和/或好处。此外,每位患者必须提供书面知情同意书。
评论:
由于粪便采集程序是非侵入性的,并且可以在不受控制的环境中进行,因此不应允许捐赠者直接从粪便捐赠中受益,以避免样本欺诈。然而,根据国家规定,捐赠者可以获得时间和旅行费用的补偿。此外,捐赠者应了解捐赠的风险和益处,因为筛查过程可能会发现以前未知的疾病(例如艾滋病毒、结直肠癌)的诊断结果或其他疾病的易感性(例如与微生物群改变相关的疾病) 。此外,捐赠者应该知道他们可以随时撤回同意。
声明 B3
可以通过粪便库对供体进行管理,以供实验使用,符合适用于艰难梭菌感染的国家和国际指南和法规,并且一般用于临床实践。
评论:
粪便库能够以标准化方式处理粪便捐赠,这适合 IBD 的进一步临床和实验程序。在粪便库中,捐献者在给患者施用粪便之前经过严格筛选,FMT 制备是标准化的,与临床环境相比,制备 FMT 样本所需的成本和时间都可能减少。此外,粪便库拥有专业知识,因此总体上可能有助于优化 FMT 样本的质量。最后,粪便库可以为无法提供此项服务的 IBD 中心提供 FMT 样本。
声明 B4
捐赠者的粪便最好在粪便库现场或进行实验程序的地点收集,遵循国家和国际指南和法规。
评论:
捐赠者应收到有关如何收集粪便的明确说明,最好是在现场或粪便库收集。如果无法做到这一点,收集的粪便应储存在 4°C 下,并在收集后 6 小时内运送到临床地点或粪便库,由经过培训的人员进行处理。
声明 B5
根据实验方案,每个捐赠者都可以参与捐赠不同的 FMT 制剂。
评论:
供体粪便可用于制备不同的 FMT 制剂(例如,新鲜样品与冷冻样品,以及每个制剂的单个供体与多个供体)。到目前为止,建议使用冷冻 FMT 样品而不是新鲜制剂,主要是因为安全性。冷冻 FMT 样本可以被隔离,直到捐赠期结束时完成全面的捐赠者筛查。对于新鲜的 FMT,在完成完整的筛选过程之前对材料进行管理。因此,对于新鲜的 FMT,建议进行更定期的供体常规筛查和菌群评估。
声明 B6
应根据国家和国际准则和法规维护和存储捐助者信息登记册。
评论:
与 FMT 流程相关的捐赠者信息登记应由国家和国际医疗保健机构监管。来自捐赠者和接受者的信息应保存至少 10 年,或符合国家和国际法规。这些数据应提供给粪便库以获得长期安全数据。
声明 B7
患者不应直接使用粪便库来治疗 IBD。FMT 样本的提供应始终在治疗医疗保健提供者的指导下进行,并符合国家和国际指南和法规。
评论:
粪便库的使用应仅限于医疗保健提供者,因为 FMT 管理需要记录和适当的后续行动,以应对任何潜在的不良事件,而这些不良事件只能在医生的监督下安全地发生。因此,患者直接使用粪便库是不合适的。
声明 B8
FMT 的整个过程(从捐赠者筛选到粪便收集和 FMT 样本管理)应具有清晰的可追溯性。因此,应保留每个 FMT 样品的等分试样以进行测试,以防发生意外的不良事件。
评论:
FMT 过程的所有步骤都应进行登记,捐赠者样本的等分试样应保留并储存在 -80°C 下,以便在发生任何意外不良事件(例如病原体感染)时进行回溯。
据报道,FMT 后出现耐药大肠杆菌传播,这表明保留供体粪便以便在可能的不良事件发生后进行进一步分析的重要性,并保证在此类情况下及时干预。
声明 B9
关于供体 FMT 制备技术方面的共同协议,将有助于在全球范围内提供程序标准化和优化,从而促进结果的解释。
评论:
尽管研究设计不同,FMT 已显示出有希望的结果,尤其是在溃疡性结肠炎中。方案的变化包括不同的 FMT 输注途径(例如,鼻十二指肠、直肠、口服)、给药频率、对照安慰剂(例如,水、自体粪便材料)和终点测量。关于冷冻粪便材料制备、储存和给药量的剂量标准化将有助于未来 FMT 研究的解释和比较,包括结果。
声明 B10
需要进行研究,来确定与粪菌移植作为治疗炎症性肠病选择的临床疗效和整体治疗效果更好相关联的供体特征。
评论:
必须进行研究来确定供体标志物,以实现 FMT 在 IBD 中的最佳治疗效果和总体成功。因此,应该对微生物群、饮食模式(问卷)和其他方面(如药物使用、家族病史、心理状态和遗传背景)进行表征,以确定改善临床结果的潜在趋势。除了特定的供体标记外,还应该研究供体-受体的植入情况。
★
声明 C1
以前进行的随机对照试验一般规模较小,且方法学上存在异质性;因此,目前还不能得出明确的结论。
评论:
在成功用于治疗艰难梭菌感染后,FMT 也在溃疡性结肠炎患者中进行了研究,首先是在非随机研究中,然后在随机对照试验中,均取得了有希望的结果,尽管存在FMT 程序和测量结果存在显着差异。事实上,尽管这些研究和随后的荟萃分析强调供体 FMT 施用后令人满意的缓解率,已发表和/或可用的随机临床试验通常规模较小且方法学上异质,因为它们在粪便输注的时间、数量和途径、FMT 供体粪便与对照(假冒)的特征方面存在差异,使得结果难以从整体上解释结果,无法得出明确的结论。
声明 C2
对于患有IBD的轻度和重度复发或难治性难免性艰难梭菌感染,建议采用FMT作为治疗选择。
评论:
FMT 对于治疗无 IBD 患者的复发性艰难梭菌感染有效, 以及患有溃疡性结肠炎和克罗恩病的患者。然而,针对溃疡性结肠炎患者的研究报告称,单剂量 FMT 无法预防溃疡性结肠炎发作。没有足够的证据推荐 FMT 作为IBD首次艰难梭菌感染的治疗方法。
声明C3
FMT 可有效诱导轻度至中度溃疡性结肠炎的缓解;然而,没有足够的证据推荐 FMT 作为常规临床实践中溃疡性结肠炎的治疗方法,其使用通常应仅限于研究环境。
评论:
迄今为止,FMT 在诱导轻度至中度溃疡性结肠炎患者缓解方面显示出有希望的结果。然而,这些研究是在溃疡性结肠炎患者队列中进行的,样本量相对较小,而且研究设计之间存在差异,使得研究之间的比较难以协调。因此,没有足够的数据支持临床常规使用 FMT 来诱导溃疡性结肠炎患者缓解。但专家们一致认为,FMT可在特定情况下使用,应具体情况具体考虑,并与有关各方详细讨论。
声明C4
随机对照试验表明,在 FMT 后获得缓解的溃疡性结肠炎患者通常在 FMT 治疗后不会持续缓解超过 1 年。
评论:
溃疡性结肠炎中的 FMT 研究缺乏有关治疗效果和持久性的长期随访数据。因此,需要对治疗后的时间进行更持续的疾病监测随访。现有数据表明,复发是可能的,为了实现长期疗效,维持治疗可能是强制性的。然而,诱导治疗和维持治疗的输注次数和剂量均应进一步研究。
声明C5
反复输注和供体-受体移植可能对于 FMT 治疗溃疡性结肠炎的成功非常重要。
评论:
来自对溃疡性结肠炎进行 FMT 的现有随机对照试验的数据表明,重复输注很重要;然而,目前对于 FMT 成功所需的最少管理次数尚未达成共识。此外,FMT 在溃疡性结肠炎中的疗效似乎也依赖于受体,表明供体-受体移植至关重要。除了鉴定对 FMT 成功可能重要的供体标记外,还应研究受体标记及其与供体粪便物质/粪便抗原相互作用的重要性。
声明C6
FMT 后肠道微生物组组成多样性的增加,可能是 溃疡性结肠炎反应的标志。
评论:
除了临床和内镜缓解等临床结果外,还应评估微生物标志物,包括微生物组多样性的改变(即增加),并将其与未来研究中 FMT 的成功或失败相关联。这些标记物可用于预测患者的反应,这有可能实现精准医疗方法的个性化治疗。
声明C7
现有数据表明,FMT 对于轻度至中度溃疡性结肠炎诱导缓解的风险较低;然而,在使用 FMT 治疗 IBD 时已有严重不良事件的报道,包括疾病恶化。
评论:
已进行的随机对照试验中对患者安全性的评估显示出良好的结果,不良事件非常有限,其中大部分与给药方式有关。一般来说,鼻十二指肠给药比直肠给药灌肠产生的不良事件相对较多;因此,后者已被普遍认为是更安全的递送途径。然而,迄今为止,尚缺乏溃疡性结肠炎患者的长期 FMT 安全性数据。
事实上,在随机对照试验中,在有限数量的患者(<10%)中观察到了严重的不良事件。这些包括当通过上消化道给药进行 FMT 时误吸和疑似小肠穿孔。与 FMT 手术相关的最常见的严重不良事件是疾病恶化,需要住院治疗,在少数情况下需要结肠切除术。
在 Costello等人的试验中,观察到 43 名接受自体 FMT 的患者中有 2 名病情恶化,而 38 名接受捐赠者 FMT 的患者中有 1 名病情恶化。
在 Moayyedi 的试验中,38 名患者中有 2 名出现斑片状炎症和脓肿。其他显着的严重不良事件包括肺炎、艰难梭菌感染或其他形式的小肠结肠炎。
声明C8
随机对照试验尚未证明 FMT 和对照组在疾病恶化或轻微或严重不良事件引起的症状方面存在显着差异。
评论:
溃疡性结肠炎中的 FMT 试验对不良事件进行了评论;然而,由于对照组和治疗组之间没有发现显着差异,因此这些不良事件被认为是给药程序的结果,而不是加工后的供体粪便材料本身。
声明 C9
溃疡性结肠炎中 FMT 后,常见的不良事件是短暂的轻微胃肠道症状,如腹胀、腹泻和肠胃气胀。
评论:
FMT 试验中高达 83% 的患者观察到轻微不良事件,包括胃肠道症状,如短暂性腹泻、肠鸣、腹痛、腹胀和肠胃气胀。也有短暂发烧的报道。大多数不良事件在手术后几天内自然消失。
声明 C10
在临床实践中,没有足够的证据推荐 FMT 作为克罗恩病的治疗方法。迄今为止,其使用应仅限于研究环境。
评论:
克罗恩病中 FMT 的可用数据非常有限,主要包括病例报告和试点研究,而不是大型随机对照试验。这些研究显示不良事件,主要包括胃肠道症状,疾病发作报告为与 FMT 相关的严重不良事件。
Vermeire等人的一项初步研究显示,六名难治性 克罗恩病患者在 FMT 后第 8 周没有差异。
在评估 FMT 在维持克罗恩病缓解方面的效果时,Sokol等人报告称,与假手术组相比,FMT 组的急性发作发生率没有显着降低。
进一步的研究应包括优化该患者群体的缓解诱导和维持。大型随机对照试验必须推荐 FMT 作为克罗恩病患者的可行治疗方法。
声明 C11
在临床实践中,没有足够的证据推荐 FMT 作为贮袋炎(Pouchitis)的治疗方法。迄今为止,其使用应仅限于研究环境。
注:贮袋炎(Pouchitis)是保留肛门的大肠全切除术(或次全切除术)术后发生在患者回肠贮袋的非特异性炎症,是溃疡性结肠炎行回肠贮袋-肛管吻合术后最为常见的并发症。
本病病因不明。大约有1/3的患者在术后5年内可能出现这种难以解释的炎症,其中2/3的患者有复发的可能性。
评论:
据信,患有贮袋炎的患者也会出现菌群失调。目前,只有有限的研究使用 FMT 来治疗贮袋炎。然而,在已发表的文献和病例报告中,该手术大多被报道是安全的,但并不有效。
与溃疡性结肠炎中 FMT 的随机对照试验类似,所进行的研究也具有异质性,并评估了不同的结果测量。因此,需要进一步研究和优化方案来确定 FMT 在贮袋炎中的潜在用途。
声明 C12
关于 FMT 在克罗恩病和贮袋炎中的安全性数据不足。
评论:
基于缺乏大型随机对照试验和长期随访数据,目前无法得出FMT治疗克罗恩病和储袋炎的安全性结论。
声明 C13
需要进一步的研究来确定 FMT 在克罗恩病和贮袋炎中的有效性和安全性。
评论:
需要对克罗恩病和储袋炎的 FMT 进行进一步研究和优化,以评估疗效并生成(长期)安全性数据,以便将 FMT 引入临床环境。
★
展望D1
未来的研究需要确定精准的 FMT 供体和受体用于治疗 IBD 的最佳特征。
评论:
FMT 已被证明是一种有前景的溃疡性结肠炎治疗策略。然而,有效率似乎受到供体特异性、受体特异性和手术特异性特征的影响。此外,供体-患者移植获得了更多支持,有利于确定通用的“超级供体”。因此,需要进一步的研究来定义理想的患者和捐赠者特征及其最佳移植。
展望D2
有必要进行对照FMT试验,以优化IBD特定表型的疗效。
评论:
未来的研究在考虑 IBD 中 FMT 的结果时应考虑严格定义的患者表型。这些研究有可能确定 FMT 给药后与阳性反应或缺乏反应相关的特定表型。
展望D3
需要确定预测 IBD 中 FMT 反应的生物标志物。
评论:
除了确定供体和受体以及患者表型可能的最佳特征外,还需要确定免疫学和微生物生物标志物来预测对治疗的反应,以避免因 FMT 治疗无反应而造成时间、成本和不良事件的损失。
此类生物标志物可以通过 16S rRNA 扩增子测序、鸟枪法宏基因组测序、蛋白质组学和/或转录组分析来检测。通过识别此类生物标志物,有可能为 IBD 的 FMT 治疗设计更有针对性的策略,从而朝着更加精确、个性化的医疗方法发展。
展望D4
未来的研究需要确定基于 FMT 的 IBD 治疗的最佳配方和给药途径。
评论:
提高 FMT 功效的最佳剂量尚未确定。迄今为止,鼻十二指肠管输送以及通过结肠镜检查或直肠灌肠进行 FMT 输注已成为 IBD 研究最多的给药途径。
然而,最近的一项研究利用含有冻干粪便微生物群的口服胶囊作为其递送系统。这种给药途径侵入性较小,因此可能更受患者青睐。需要更多的随机对照试验来优化剂量和给药途径。
展望D5
需要进行研究来积累有关使用补充策略来提高 FMT 疗效的循证信息。
评论:
通过 FMT 调节肠道微生物组成的成功率可以通过补充策略来提高,例如捐赠者和接受者的支持性抗炎饮食, 通过优化FMT前的肠道准备,也可以通过抗生素预处理。如益生菌、益生元、合生元和后生元补充。
扩展阅读:
展望 D6
需要进行研究来评估 FMT 作为 IBD 的独立治疗方法或与当前可用的治疗方式相结合的作用。
评论:
除了评估补充策略(D5)之外,还需要进一步研究 FMT 与目前使用的 IBD 联合疗法(从皮质类固醇到生物制剂和 JAK 抑制剂)的组合。
这种针对免疫反应和肠道微生物组成的组合方法可能比单独的每种策略带来更高的缓解率。此外,应研究预防发病和/或术后复发,以及 FMT 对癌症治疗的影响,反之亦然。
★
本手稿的作者代表 IBD 各个方面的国际专家组,他们一致认为,在将 FMT 推广为公认的 IBD 治疗策略之前,有必要进行进一步的研究。人们普遍认为 FMT对于 IBD 患者是安全的,特别是对于溃疡性结肠炎患者。
文献中报道的大多数并发症主要与粪便输注的给药途径有关,而不是与感染传播有关。然而,为了避免不良事件的负担,应遵循针对艰难梭菌感染的 FMT 治疗现有的国际指南,来严格筛选捐赠者。
IBD 中的粪便微生物群移植 (FMT) 途径:从健康供体到恢复疾病患者的肠道微生物群
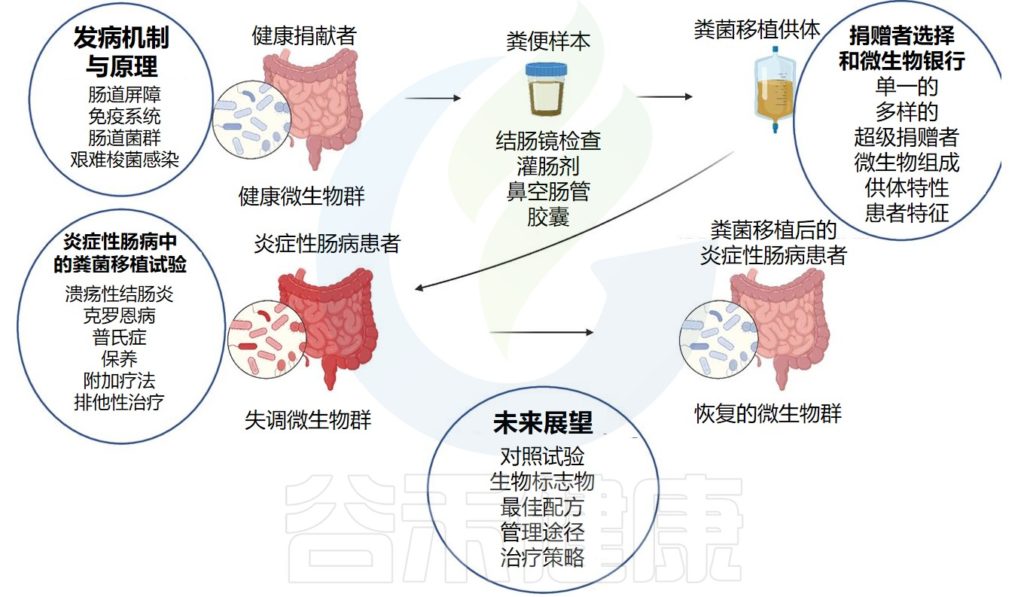
doi: 10.1136/gutjnl-2023-329948.
应投入粪便库以促进FMT研究,并应考虑通过实施永久捐赠者登记、通过微生物群特征和捐赠者健康状况筛选捐赠者粪便材料以及优化捐赠者粪便材料、粪便样本的储存,来治疗IBD的可能性。
粪便库应登记所有捐献者和患者数据,以便有效追踪并监测 FMT 施用后健康状况的变化(例如缓解/发作、心理状态)。
已经进行了几项 FMT 试点研究和随机对照试验来治疗 IBD,但使用的是异质研究设计。现有的结果,特别是在溃疡性结肠炎方面,是有希望的,但似乎依赖于供体和患者。然而,要将 FMT 纳入日常胃肠道实践中,还需要进一步研究来优化短期和长期成功率,并进一步评估安全性。
该方法应确定:最佳给药途径、剂量、频率、供体-受体植入、患者表型,以及 FMT 反应的免疫学和微生物组生物标志物的识别。
总而言之,这样将有助于 FMT 的标准化及其治疗溃疡性结肠炎的临床应用。对于克罗恩病和储袋炎,必须进行进一步的研究来评估其使用的(长期)安全性和有效性。尽管如此,这一系列研究可能会从优化其在溃疡性结肠炎中的使用所采取的措施中受益匪浅。
未来的工作包括对供体微生物群进行严格表征,以及调查 FMT 前后对 IBD 接受者的影响,这可用于最大限度地提高 FMT 功效并阐明作用机制。
通过研究供者和受者的支持性饮食、肠道准备、抗生素预处理、益生菌、益生元、合生元和生元后支持,以及与 IBD 治疗同时进行的联合治疗,进一步提高 FMT 的疗效至关重要。此外,识别与 FMT 成功预测相关的特定微生物菌株,可能会开发出明确的单菌株或多菌株益生菌。
参考文献:
Dini-Andreote F, Custer GF. Ecological principles of fecal microbiota transplantation. Trends Microbiol. 2023 Jun 8:S0966-842X(23)00162-2.
Lopetuso LR, Deleu S, Godny L, Petito V, Puca P, Facciotti F, Sokol H, Ianiro G, Masucci L, Abreu M, Dotan I, Costello SP, Hart A, Iqbal TH, Paramsothy S, Sanguinetti M, Danese S, Tilg H, Cominelli F, Pizarro TT, Armuzzi A, Cammarota G, Gasbarrini A, Vermeire S, Scaldaferri F. The first international Rome consensus conference on gut microbiota and faecal microbiota transplantation in inflammatory bowel disease. Gut. 2023 Jun 20:gutjnl-2023-329948.
谷禾健康
微生物群代表宿主肠道中存在的整个微生物群。肠道内细菌界的“贫富差距”非常大,和人类社会创造的大部分的财富都流向少部分人口的现实类似,只有少数几十种的细菌分布在近乎90%的人群中。换句话说,大部分细菌都只能在特定的环境中生存,只有少数细菌适应能力超强,这可能也是我们需要重点关注的对象。
如果把不同细菌品种看作互相竞争的国家,那么细菌界的“超级大国”就属拟杆菌门和厚壁菌门了。当然它们都不是单独某一种细菌,而是一大类细菌的统称。
然而近年来随着患有肠内外疾病的人群越来庞大,变形菌门也逐渐被关注和研究,变形菌门是含有最丰富细菌的门,麾下包括多种“著名的”病原菌,如大肠杆菌、幽门螺杆菌、克雷伯氏菌、沙门氏菌、志贺氏菌、绿脓杆菌、霍乱弧菌、空肠弯曲菌、鼠疫杆菌、脑膜炎双球菌、淋球菌等,让其备受关注。
事实上,越来越多的数据将变形菌确定为疾病的可能微生物特征。目前主要证据涉及代谢紊乱和炎症甚至癌症。然而,最近的研究表明,在哮喘和慢性阻塞性肺病等肺部疾病中也有作用,有些疾病中变形菌不受控制扩张导致疾病易感和发生。
变形菌(proteobacteria)是细菌中最大、种类最多的一个门,它们在系统发育、生态和致病方面具有广泛的重要性。所有变形菌都是革兰氏阴性菌,外膜主要由脂多糖组成。
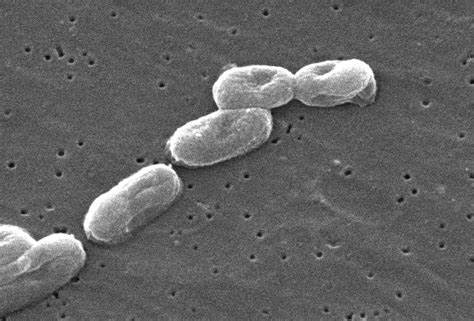
图源:esacademic
变形菌门主要是由核糖体RNA序列定义的,名称取自希腊神话中能够变形的神普罗透斯(这同时也是变形菌门中变形杆菌属的名字),因为该门细菌具有极为多样的形状,代谢特征等。
△ 形状:杆状和球菌、弯曲的、螺旋状的、环状的、丝状的和带鞘的细菌都有。
△ 新陈代谢:新陈代谢类型也多种多样,一系列代谢特征包括化学自养(从无机化合物的氧化中获取能量)、化学有机营养(从有机化合物的氧化中获取能量)和光养(从光中获取能量)。
△ 氧气利用:从严格厌氧菌和严格需氧菌到兼性厌氧菌和微需氧菌株的都有,但是大多数变形菌门的成员是兼性厌氧菌。
△ 运动:许多使用鞭毛移动,但有些不能移动或依赖细菌滑动,而一些细菌是不运动的。
△ 生态分布:变形菌门的成员具有极大的可变形态和多才多艺的生理学,这使它们在各种生态位中生存具有竞争优势。已观察到变形菌在不同生境中无处不在。
Shin NR, et al., Trends Biotechnol. 2015
植物 、海水、淡水 ,空气,以及人和动物的身体部位,包括肠道、口腔、皮肤、阴道。尽管存在研究间差异,但健康人口腔微生物群的变形菌相对丰度最高(17.2-36.8%),其次是皮肤(6.8-30.0%)、胃肠道(2.5-4.6%)和阴道(2.3%)。
在系统发育学上,变形菌是根据小核糖体亚单位RNA基因(16S rRNA)的测序定义的。这是一个巨大的革兰氏阴性原核生物门,原线粒体起源于此。
图片来源:Maria Lane,eportfolio
该门主要分为以下几大类:
最初,变形菌包括 α、β、γ 和 δ 四个亚类。ε变形菌 和 δ变形菌 通常被认为是最古老的变形菌群,因为它们包括利用硫化合物进行能量代谢的专性厌氧菌。
α变形菌(Alpha-proteobacteria)
第一类变形菌是α-变形菌。这一类的统一特征是它们是寡营养生物,能够生活在低营养环境中,如深海沉积物、冰川或深层地下土壤。同时α-变形菌是多样化的细菌分支之一,在生活方式、地理分布和基因组大小方面表现出极大的差异。
在 α-变形菌 中有两个重要分类群,衣原体和立克次体,它们是专性细胞内病原体,这意味着它们的部分生命周期必须发生宿主细胞内。由于它们无法合成自己的三磷酸腺苷 (ATP),因此,量需求依赖宿主于细胞。
立克次体属是人类很多严重疾病的病原体。例如,布鲁氏菌属、埃立克体属和立克次氏体。立克次氏杆菌会导致落基山斑疹热,这是一种威胁生命的脑膜炎(包裹大脑的膜发炎)。R. rickettsii 感染蜱,并可以通过被感染的蜱叮咬传播给人类。此外,布鲁氏菌科(Brucellaceae)和巴尔通氏菌科(Bartonellaceae)的细菌是人类病原体。
α-变形菌 还包括固氮细菌,例如固氮螺菌属和根瘤菌属。这两种细菌都使用一种称为固氮酶途径的复杂酶途径将大气中的氮 (N2) 转化为氨 (NH3)。此外,α变形菌还包括硝化细菌。这种类型的细菌将氨和铵 (NH4+) 还原为硝酸盐 (NO3–)。乙酸杆菌属和葡糖杆菌属的变形菌可用于生产乙酸。
β变形菌(Beta-proteobacteria)
与依靠最少量营养物质生存的 Alpha-proteobacteria 不同,Beta-proteobacteria 类是富营养生物,这意味着它们需要大量的有机营养物质。
Beta-proteobacteria 通常在需氧和厌氧区域之间生长(例如,在哺乳动物的肠道中)。一些属包括作为人类病原体的物种,能够引起严重的,甚至可能危及生命的疾病。例如,奈瑟球菌属包括淋病奈瑟菌( STI淋病的病原体)和脑膜炎奈瑟菌(细菌性脑膜炎的病原体)
β变形菌中的亚硝化单胞菌可以将亚硝酸盐还原为亚硝酸盐 (NO2–)。同时,硫杆菌属物种是将硫化氢 (H2S) 和元素硫氧化成硫酸盐 (SO42-) 的细菌,以及用于污水处理的菌胶团(Zoogloea)和Sphaerotilis 。
γ变形菌(Gamma-proteobacteria)
最多样化的革兰氏阴性细菌是γ-变形菌,它包括许多人类病原体。包括几个医学和科学上重要的细菌群,例如肠杆菌科、弧菌科和假单胞菌科。
此外,许多重要的病原体属于这一类,例如:
Richard B. Frankel
△ 铜绿假单胞菌
一个庞大而多样的科,假单胞菌科,包括假单胞菌属。铜绿假单胞菌在该属内,它是一种病原体,可以造成身体不同部位的各种感染。铜绿假单胞菌是一种严格需氧、不发酵、高度运动的细菌。
它通常可能造成伤口和烧伤感染,也可能是慢性尿路感染的原因,并且可能是囊性纤维化患者或机械呼吸机患者呼吸道感染的重要原因。
铜绿假单胞菌感染通常难以治疗,因为该细菌对许多抗生素具有抗性,并且具有形成生物膜的非凡能力。
△ 肠杆菌科
肠杆菌科是属于γ-变形菌 的一大类肠道细菌。它们是兼性厌氧菌,能够发酵碳水化合物。在这个家族中,微生物学家认识到两个不同的类别。
第一类,大肠杆菌,以其原型细菌种类大肠杆菌命名。大肠菌能够完全发酵乳糖(即产生酸和气体)。
第二类,非大肠杆菌,要么不能发酵乳糖,要么不能完全发酵(产生酸或气体,但两者不能同时产生)。
非大肠杆菌包括一些值得注意的人类病原体,例如沙门氏菌属,志贺氏菌,鼠疫耶尔森氏菌。
δ 变形菌(Delta-proteobacteria)
δ-变形菌(Delta-proteobacteria )包括基本好氧的形成子实体的粘细菌和严格厌氧的一些种类,如脱硫球菌属(Desulfococcus)、脱硫线菌属(Desulfonema)、硫酸盐还原菌(脱硫弧菌属(Desulfovibrio)、脱硫菌属(Desulfobacter)、和硫还原菌(如除硫单胞菌属Desulfuromonas),以及具有其它生理特征的厌氧细菌,如还原三价铁的Geobacter和互营菌属(Syntrophus)。
△ 蛭弧菌属:
δ-变形菌还包括蛭弧菌属,Bdellovibrio侵入宿主细菌的细胞,将自身定位在周质中,即质膜和细胞壁之间的空间,以宿主的蛋白质和多糖为食。这种感染对宿主细胞是致命的。
△粘细菌:
粘细菌(“粘液细菌”)是一组主要生活在土壤中并以不溶性有机物质为食的细菌。与其他细菌相比,粘细菌具有非常大的基因组,例如 9-1000 万个核苷酸。
Sorangium cellulosum 拥有最大的已知(截至 2008 年)细菌基因组,有 1300 万个核苷酸。
粘细菌产生许多在生物医学和工业上有用的化学品,例如抗生素。他们将这些化学物质输出到细胞外。
ε变形菌(Epsilon-proteobacteria )
ε-变形菌(Epsilon-proteobacteria) 是革兰氏阴性微需氧细菌(意味着它们在其环境中只需要少量氧气)。多数是弯曲或螺旋形的细菌,如沃林氏菌属(Wolinella)、螺杆菌属(Helicobacter)和弯曲菌属(Campylobacter)。它们都生活在动物或人的消化道中,为共生菌(沃林氏菌在牛中)或致病菌(螺杆菌在胃中或弯曲菌在十二指肠中)。
△ 弯曲杆菌:
变形菌门Epsilon-proteobacteria 中的两个临床相关属是弯曲杆菌属和螺杆菌属,它们都包括人类病原体。
弯曲杆菌可引起食物中毒,表现为严重的肠炎(小肠发炎)。这种由空肠弯曲杆菌引起的疾病在发达国家相当普遍,通常是因为食用了受污染的家禽产品。鸡通常携带空肠弯曲杆菌在胃肠道和粪便中,它们的肉在加工过程中可能会受到污染。
△螺杆菌:
螺杆菌是ε-变形菌的一个属,具有特征性的螺旋形状。它们最初被认为是弯曲杆菌属的成员,但自 1989 年以来,它们独立为自己的属。
螺杆菌属属于ε-变形菌,弯曲杆菌目,螺杆菌科,已经有超过 35 种。已经发现一些菌生活在上胃肠道的内壁,以及哺乳动物和一些鸟类的肝脏中。
该属中最广为人知的物种是幽门螺杆菌,它感染多达 50% 的人口。这种细菌的某些菌株对人类具有致病性,因为它与消化性溃疡、慢性胃炎、十二指肠炎和胃癌密切相关。它也作为该属的模式种。
幽门螺杆菌在胃的高酸性环境中存活的能力有些不同寻常。它产生脲酶和其他酶来改变其环境以降低其酸性。
幽门螺杆菌也有它存在的意义,可能抑制引起结核的细菌(结核分枝杆菌),预防哮喘,克罗恩病,食管反流,腹泻病以及食道癌。
❥ 识别微生物编码的基因,与特征相关联
栖息在哺乳动物肠道中的微生物编码了大量的蛋白质,这些蛋白质有助于广泛的生物功能,从调节免疫系统到参与新陈代谢。
我们从这些微生物中识别蛋白质编码基因并将基因水平与疾病、药物功效或副作用以及其他宿主特征相关联。
例如,与传统的高纤维农业饮食相关的人类肠道微生物群编码了参与纤维素和木聚糖水解的基因家族,而这些基因家族在吃典型西方饮食的人群(年龄匹配)中不存在。
一般编码适应肠道环境所必需的功能的微生物有很强的选择性,在不同宿主中具有大量冗余的基因库。然而,目前的研究和临床很容易忽略健康人类微生物组之间基因丰度的生理意义差异。
❥ 较少丰度的变形菌门,才是是跨宿主丰度变异性最大的基因的主要来源
人体肠道通常由拟杆菌门和厚壁菌门主宰,这些门内的进化枝(尤其是拟杆菌属、普氏菌属和瘤胃球菌科)是最常用于将个体聚集成“肠型”,因为它们解释了最多的分类变异。Bacteroidetes 与 Firmicutes 的比率也被推定为疾病或健康的潜在生物标志物。
有人提出,人类肠道微生物组中可能存在少量“肠型”,每一种都具有不同的分类组成。因此,虽然拟杆菌门和厚壁菌门可能对宿主之间的分类变异贡献最大,但变形菌门的丰度可能会捕获更多的功能变异。
与先前确定的肠型标记分类群相比,变形菌门的水平和可能的 Euryarchaeota 更好地解释了肠道微生物基因功能的人与人之间的差异。
在肠型研究中遗漏了这些不太丰富的门,可能是因为肠型是通过倾向于对高丰度分类群进行更多加权的方法鉴定的,并且肠型是从分类学而非功能数据中鉴定的。这对解释人类肠道微生物群的分类数据具有重要意义。
例如,变形菌门的过度生长与代谢综合征和炎症性肠病有关。通过 TLR5 敲除小鼠测试的肠道炎症关联到变形菌门(超过拟杆菌门和厚壁菌门),并且一些变形杆菌可以在这种背景下诱发结肠炎,可能导致反馈循环。因此,可变基因家族对解释人类肠道微生物群的分类数据具有重要意义。
备注:肠道受体蛋白TLR5参与积极地塑造新生小鼠肠道微生物群落的长期组成,敲除的Toll样受体(TLR5),是免疫系统识别鞭毛细菌(比如变形菌和梭状芽孢杆菌)的关键受体,缺乏它则机体可能不会在感知到细菌鞭毛时对细菌产生免疫应答。
肠道相关微生物群落组成的变化与许多人类疾病有关,但驱动这种不平衡(生态失调)的机制尚不完全清楚。
在肠道菌群失调期间观察到的最一致和最强大的生态模式是属于变形菌门的兼性厌氧细菌的扩张。
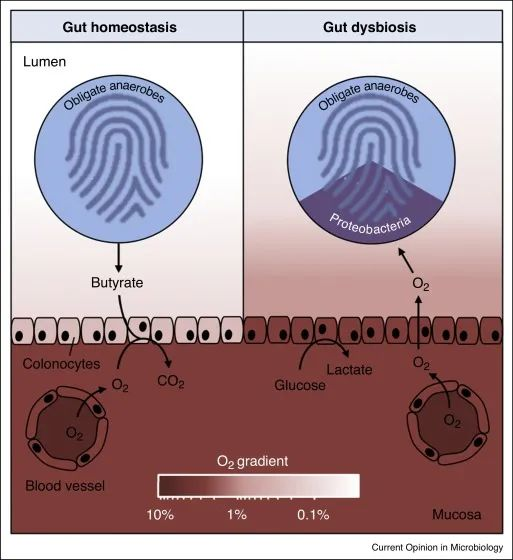
变形菌的菌群失调是上皮功能障碍的微生物特征
在肠道稳态期间(左),微生物群衍生的丁酸盐的 β 氧化导致上皮缺氧,从而维持大肠腔内的厌氧状态。反过来,腔内厌氧症导致肠道微生物群内专性厌氧菌占主导地位。
备注:丁酸(Butyrate acid,BA),俗称酪酸,是构成脂肪的一种脂肪酸,含有4个碳原子又称短链脂肪酸。人体的丁酸部分来自于食物中丁酸的吸收,主要的来自结肠厌氧菌的发酵产生。人体结肠产生的短链脂肪酸丁酸占比大部分)。
在肠道菌群失调期间(右),表面结肠细胞通过无氧糖酵解获得能量,从而导致上皮氧合增加,这种上皮功能障碍破坏了管腔中的厌氧菌,从而通过有氧呼吸推动兼性厌氧变形菌的扩张。
健康结肠的厌氧菌导致肠道微生物群的组成以专性厌氧菌为主,而菌群失调通常与兼性厌氧变形菌的丰度持续增加有关,这表明厌氧菌的破坏。
结肠上皮是缺氧的,但肠道炎症或抗生素治疗会增加结肠中的上皮氧合,从而破坏厌氧作用,通过有氧呼吸驱动兼性厌氧变形菌的菌群失调。
肠沙门氏菌(S. enterica)是一种食源性病原体,属于肠杆菌科,变形菌门,可引起小鼠结肠炎。在肠道沙门菌S. enterica诱导的结肠炎期间,肠腔内的氧气可用性增加,这表明结肠中病原体的氧气呼吸依赖性大量繁殖以及随之而来的专性厌氧梭状芽胞杆菌的丰度下降。
同样,结肠隐窝增生由鼠肠道病原体柠檬酸杆菌(肠杆菌科,变形菌门)引发,可提高肠腔内的氧气利用率,从而通过有氧呼吸推动变形菌病原体扩张。
这些观察结果表明,变形菌的菌群失调是上皮功能障碍的潜在诊断微生物特征,建议将变形菌负荷作为生态失调和疾病的潜在诊断标准,所以在谷禾即将更新的肠道菌群检测报告中,我们会加入变形菌门丰度和参考范围这一指标。
大肠中专性厌氧菌的优势可能是宿主环境的氧气限制严重的结果,这反过来又对用于营养物质的分解代谢途径产生重要影响。
避免被上消化道中的宿主酶降解的复合碳水化合物,可以被大肠中的专性厌氧细菌水解并发酵成更小的化合物。专性厌氧菌最终将许多发酵产物转化为短链脂肪酸,其中乙酸盐、丙酸盐和丁酸盐是最丰富的产物。宿主吸收了大约 95-99% 的微生物产生的短链脂肪酸,它到达血流以影响免疫发育。因此,大肠中专性厌氧菌的优势确保了维持肠道稳态的代谢物的产生。
变形菌是平衡的肠道相关微生物群落中的一个次要成分。然而,由遗传易感性、化学物质或肠道病原体感染引起的肠道炎症会导致小鼠模型中变形杆菌的管腔扩张不受控制。
同样,在患有严重肠道炎症的人类中,包括炎症性肠病、结直肠癌或坏死性小肠结肠炎的患者中观察到变形杆菌的丰度增加。此外,在包括肠易激综合征和代谢综合征在内的低水平肠道炎症条件下观察到大量变形菌。
肠道炎症增加了替代电子受体的可用性,这些电子受体通过厌氧呼吸支持兼性厌氧细菌的生长。肠道炎症过程中产生的活性氧可以将内源性硫化合物氧化为连四硫酸盐,这是一种电子受体,通过连四硫酸盐呼吸作用在鼠结肠中驱动类似肠沙门氏菌和Yersinia enterocolitica(一种属于肠杆菌科,变形菌门的病原体)的管腔扩张 。
一氧化氮由宿主酶产生化学诱导的结肠炎或由遗传易感性引发的结肠炎期间的诱导型一氧化氮合酶(iNOS) 。一氧化氮在肠腔内分解成硝酸盐,从而通过硝酸盐呼吸支持生长,从而增加小鼠结肠中共生大肠杆菌的丰度。类似,宿主衍生的硝酸盐的呼吸有助于在 S. enterica 诱导的小鼠结肠炎期间腔内病原体扩张。
有趣的是,即使在没有明显肠道炎症的情况下,例如在抗生素治疗期间,呼吸电子受体也有助于细菌群落从专性厌氧菌转变为兼性厌氧菌。为了支持这一观点,用链霉素治疗小鼠可将盲肠中的氧化还原电位提高到接近需氧培养液的水平。链霉素治疗通过硝酸盐呼吸和氧气呼吸的结合增加结肠中共生大肠杆菌或致病性肠杆菌的生长。
其他类似研究的结论也表明,氧气,单独或与其他呼吸电子受体结合,是广泛的胃肠道失衡中肠道菌群失调的常见驱动因素。因此,为了开发新的预防或治疗策略,必须了解在肠道菌群失调期间呼吸电子受体的可用性如何升高。
基于这些观察,有人提出变形菌的扩增是肠道菌群失调的微生物特征,而氧气、用药,遗传易感,肠炎驱动了变形菌的扩张,反过来加剧疾病的进展。
宿主遗传因素和外在环境因素,如饮食和生活环境,不断影响肠道微生物群的分类和功能组成。鉴于具有高度稳定性的平衡肠道微生物群与宿主的免疫系统具有共生相互作用,能够抑制变形杆菌失控的扩张,肠道中变形杆菌的大量繁殖可以反映肠道微生物群落结构的不稳定;这种不稳定的结构可以在非疾病状态下观察到(例如,新生儿期 和胃绕道手术后和疾病状态例如,代谢紊乱和肠道炎症)。
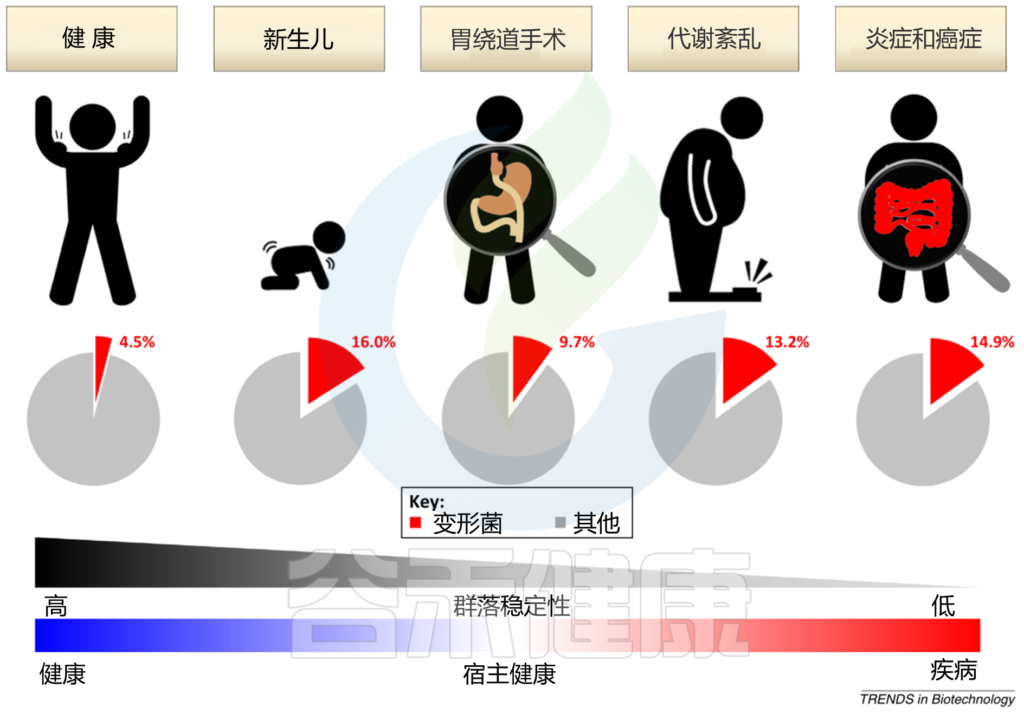
Shin NR, et al., Trends Biotechnol. 2015
在新生儿胃肠道的初始定植期间,兼性厌氧变形菌使肠道生态位有利于专性厌氧菌的定植;后者很快被专性厌氧的厚壁菌门和拟杆菌门所取代,它们在健康成年人的肠道微生物群中占主导地位。胃绕道手术导致的胃肠道重排可以改变 pH、胆汁流量和肠道激素,所有这些因素都会影响变形杆菌的丰度。
新生儿肠道中的变形菌
新生儿肠道中的微生物群备受关注,因为它不仅反映了细菌群落的脆弱结构,而且反映了哺乳动物肠道微生物群的真正起源。新生儿肠道中的细菌群落由于其快速的时间变化而不稳定。然而,这种脆弱性与更重要的肠道菌群定植有关,例如严格的厌氧菌。
具体来说,由于新生儿肠道中的氧气丰富,生命第一周的微生物群经常以兼性厌氧菌为主,主要是变形菌属(例如,埃希氏菌属、克雷伯氏菌属和肠杆菌属)。这些兼性厌氧菌通过消耗氧气、改变 pH 值、降低氧化还原电位并产生二氧化碳和营养物质,使栖息地适合严格的厌氧菌定殖。
因此,可以推测变形杆菌在为新生儿肠道准备好接受严格厌氧菌的连续定植方面发挥了作用,这些厌氧菌在健康成人的肠道中含量丰富。
最近对母体胎盘微生物组的一项研究描述了共生细菌群落的存在,其中大肠杆菌的丰度最高。尽管关于胎盘微生物群的活力和起源存在争议,但在母体胎盘中发现的这些有趣的细菌群落与来自母体羊水和新生儿胎粪的细菌群落重叠。
因此,新生儿肠道中的变形菌可能通过胎儿在子宫内吞咽羊水从母体胎盘传播。有趣的是,妊娠后期孕妇肠道中变形菌的比例增加。这意味着母亲微生物群中的这种特定细菌群转移到了新生儿身上。
在新生儿肠胃道中观察到的变形杆菌定植生长的持续时间很可能在母体控制之下。事实上,新生儿微生物群会受到各种母体因素的影响,例如分娩方式、饮食和怀孕期间接触抗生素。
最重要的是,新生儿肠道中变形菌的丰度受喂养类型的影响,这些细菌在配方奶喂养的婴儿中的频率更高,但在母乳喂养的婴儿中很少见。
人乳寡糖 和分泌型 IgA 的产生参与在最初的肠道定植过程中选择性抑制变形菌。因此,越来越多的人认为,及时减少变形菌的丰度是初始微生物定植的正常部分,而这种定植模式的紊乱与新生儿疾病的风险增加有关。
肠道中微生物群和宿主细胞之间的相互作用对于免疫系统的形成和调节至关重要,由于肠腔内有大量外源性抗原,免疫系统必须严格调节其反应以维持与共生菌的共生关系。共生体传递一种信号,诱导宿主免疫的耐受性反应。因此,宿主可以区分有益的本土微生物和有害病原体,并建立健康的微生物群。
变形杆菌的主要分类及其与IBD的关系
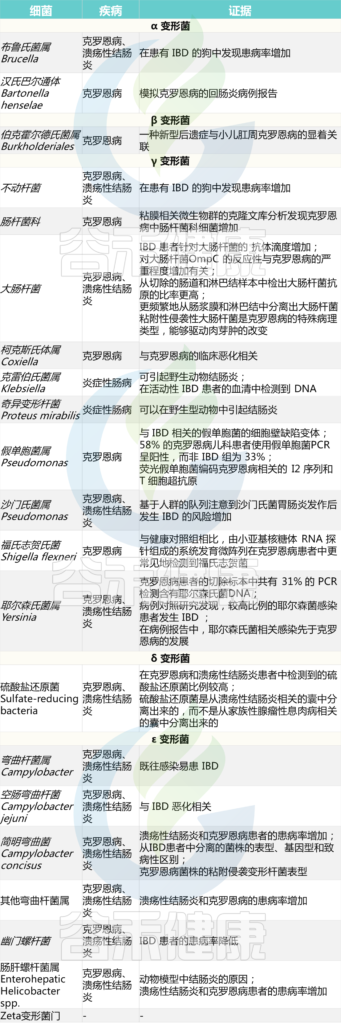
Mukhopadhya I, et al., Nat Rev Gastroenterol Hepatol. 2012
为了防止对共生细菌的炎症反应,肠道内的免疫细胞,如单核吞噬细胞(巨噬细胞和树突状细胞)和 CD4 + T 细胞,对微生物刺激反应迟钝或表现出共生反应。
同时,黏膜免疫系统负责清除病原体,这一过程需要积极的促炎信号级联反应。因此,不适当的免疫反应会破坏肠道稳态,引发生态失调,并导致局部和全身炎症和代谢功能障碍。
这种慢性进行性肠道炎症的状态在临床上被诊断为炎症性肠病 (IBD),其中包括溃疡性结肠炎 (UC) 和克罗恩病 (CD)。IBD 的确切病因仍然无法获得,但新出现的证据表明,肠道微生物群成为了这种疾病的主要嫌疑。
许多研究报告了动物和人类各种炎症持续条件下微生物群组成的改变。在这种情况下,通常发现变形菌在疾病中增加,变形菌在肠道炎症中的作用已在各种结肠炎小鼠模型中得到解决,与疾病呈正相关。
例如,使用易发炎症的小鼠模型,即鞭毛蛋白受体 TLR5 缺陷小鼠 (T5KO),发现,进展为结肠炎的小鼠表现出明确的微生物群特征,其特征是变形菌的水平增加,尤其是大肠杆菌属。并且一些作者已将其确定为微生物群不稳定性的潜在标志物,因此易诱发疾病发作。
与变形杆菌属大量繁殖的同时,结肠炎Tlr5-/- 小鼠表现出杂乱无章的结肠粘液层,与非结肠炎Tlr5-/- 同胞相比,感染性病原体的清除延迟。
这些结果表明,短暂不稳定的肠道微生物群,尤其是以变形菌为主的群落,会使遗传易感的小鼠易患慢性结肠炎。
先天免疫反应失调推动变形杆菌生长的假设这反过来又会促进肠道炎症,这一点得到了其他小鼠模型研究的支持,这些小鼠模型具有影响适应性免疫的突变,白细胞介素 (IL)-10 是对本地微生物群产生免疫耐受所需的主要免疫调节细胞因子。
IL-10 缺陷小鼠由于对肠道菌群不耐受而表现出自发性结肠炎。随着结肠炎症的发生和发展,在定植常规微生物群或缺乏特定病原体的微生物群的 IL-10-/- 小鼠中,变形杆菌和大肠杆菌比野生型小鼠多。
在另一项对 IL-10 缺陷小鼠的研究中,富含饱和乳脂的饮食扰乱了肠道微生物群,导致亚硫酸盐还原Delta-proteobacteriumBilophila wadsworthia 大量繁殖。这种病原菌在 IL-10 -/-小鼠中诱导促炎性黏膜免疫反应并促进自发性结肠炎的发生率和严重程度;它还在喂食高乳脂饮食的野生型小鼠中促进葡聚糖硫酸钠 (DSS) 诱导的结肠炎。
除了对结肠炎的易感性与肠道变形菌的相对丰度之间存在正相关性之外,对先天性和适应性免疫系统均缺陷的小鼠的研究提供了支持变形菌在肠道炎症中的致病作用的证据。
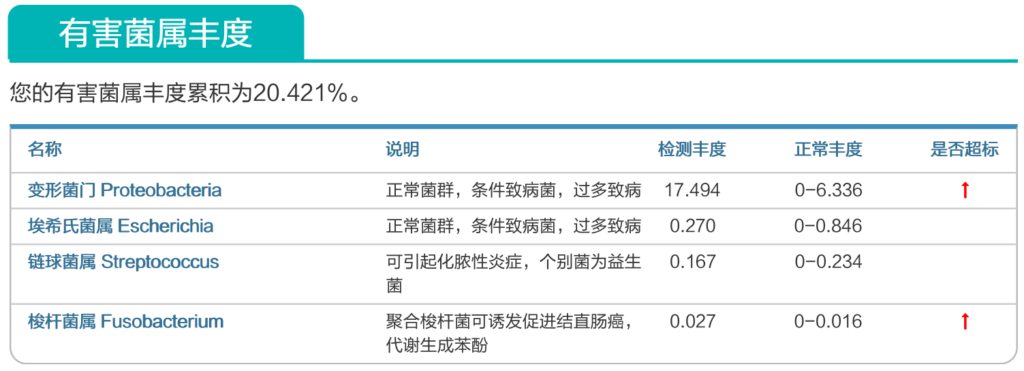
来源:谷禾健康肠道菌群数据库
谷禾健康肠道菌群检测大数据也显示,在炎症性肠病,结直肠癌等患者的肠道菌群检测报告中,85%以上的患者显示变形菌门超标或多项变形菌门病原菌超标或占比丰度偏高。
在最近的一项研究中重现了,结肠炎中变形杆菌的显着扩增,该研究比较了患有活动性结肠炎的 TRUC 小鼠的肠道微生物组与因庆大霉素、甲硝唑或抗肿瘤坏死因子 (TNF)-α 治疗而缓解的小鼠的肠道微生物组。
值得注意的是,从 TRUC 小鼠的粪便中分离出的两种肠杆菌科细菌(肺炎克雷伯菌和奇异变形杆菌)即使在没有任何遗传免疫缺陷的受体小鼠中也足以引发结肠炎。
然而,这两种微生物的致结肠潜力并未在无菌 TRUC 小鼠中复制,这表明结肠炎的发病机制需要其他共生成员。口服伤寒杆菌,另一种富含 TRUC 小鼠的变形菌,也会在非结肠炎 TRUC 小鼠中引发结肠炎,这些小鼠具有大量的促炎细胞因子(例如,TNF-α)。
遗传易患结肠炎的小鼠的生态失调与人类 IBD 特别相关,因为与 IBD 相关的风险等位基因或多态性与先天性和适应性免疫成分有关。与小鼠研究相似,两项人类研究表明,与健康受试者相比,IBD 患者肠道微生物群落的特点是微生物多样性低、变形菌门(尤其是肠杆菌科)的产物以及厚壁菌门的减少。
一项人类队列研究发现,核苷酸结合寡聚化结构域 (NOD)-2 风险等位基因剂量与 IBD 患者肠道标本中肠杆菌科的相对丰度呈正相关。
在 UC 患者中,与炎症的中度和轻度阶段相比,在严重阶段观察到的变形杆菌水平显着升高。
在新发 CD 的初治儿科患者和非 IBD 对照受试者之间,回肠和直肠活检(但不在粪便样本中)的粘膜相关微生物组存在明显差异。变形菌的相对丰度增加,包括肠杆菌科、巴氏杆菌科和奈瑟菌科,将 CD 相关细菌群落与健康对照组区分开来。与慢性炎症一致,伴随变形杆菌属优势的肠道微生物群落改变不仅见于传染性病原菌或原生动物寄生虫引起的急性炎症,而且见于实验性和人类结肠炎相关的结肠直肠癌。
最有趣的生物体,通过一个孤立的病例报告与 IBD 有关,该病例报告一名感染这种细菌的小男孩在放射成像上出现回肠增厚,这是克罗恩病的典型表现。
血清学研究表明,与健康对照相比,克罗恩病患者的大肠杆菌抗体数量增加。具体地说,已发现37-55 % 的克罗恩病患者、2-11% 的溃疡性结肠炎患者和 <5% 对照组患者的百分比。
此外,克罗恩病患者中这些抗体的存在与更严重的表型相关,其特征是小肠受累、疾病进展频繁、病程更长和对手术的需求更大,这表明它们可以用作克罗恩病的预后标志物。
饮食被认为是塑造肠道微生物结构的最关键的环境因素之一。
△ 肥胖:丰富的变形菌为特征
累积证据表明,人类和啮齿动物的健康和肥胖个体的肠道微生物群的分类和功能组成存在差异。
此外,肥胖表型通过粪便移植的传播能力表明肠道微生物群落的改变,作为主要触发因素,是因果关系而不是结果。
肠道微生物群的分类组成失衡,称为生态失调,在代谢紊乱中得到充分证明,并被视为厚壁菌门相对于拟杆菌门的相对丰度增加(F:B 比率)。尽管一致的研究结果普遍支持这一概念,但代谢紊乱期间的生态失调通常包括变形菌的患病率增加。
例如,一项对儿童肠道微生物群的研究发现,与低脂肪、高纤维饮食儿童相比,食用高热量、高脂肪、低纤维饮食的欧洲儿童中的变形杆菌数量更多。
这种差异揭示了肠道微生物群落对非洲儿童饮食的适应性,这可以提高他们从难消化的多糖中获取能量的能力。此外,一些导致有害代谢影响的因素,例如食用无热量的人造甜味剂和乳化剂(通常用作加工食品中的添加剂),也会损害血糖控制并诱发变形杆菌繁殖。
特别是,人造甜味剂介导的肠杆菌科和Delta-proteobacteria类相对丰度的升高与 2 型糖尿病 (T2DM) 患者的结果一致,表明葡萄糖稳态和肠道变形菌之间存在联系。相比之下,证明变形菌的丰度与糖尿病表型呈负相关,挑战代谢疾病患者中高丰度变形菌的概念。
为支持代谢紊乱与变形菌属的扩张之间的关系,变形杆菌属的致肥胖潜力已在无菌小鼠的单关联研究中被确定。
在对一名病态肥胖志愿者进行的减肥试验中,肠杆菌科的相对丰度逐渐减少,假设肠杆菌在代谢恶化中具有致病作用。用从肥胖的人类肠道中分离出来的阴沟肠杆菌B29对无菌小鼠进行单菌定植足以诱导肥胖和胰岛素抵抗。
这一发现支持了这样一个假设,即以丰富的变形菌为特征的不稳定的肠道微生物群落可能代表代谢紊乱的主动特征,而不是被动后果。
△ 营养不良儿童:变形菌成为优势菌
营养不良会导致其他健康问题,例如消瘦和夸希奥科病。在发展中国家,营养不良是威胁 5 岁以下儿童生命的疾病。
营养不良的主要病因是在孕期或产后头 3 年由于大量营养素缺乏和微量营养素缺乏导致的慢性能量负平衡。
然而,最近的研究表明,孟加拉国和马拉维营养不良儿童的肠道微生物群落结构和基因含量与营养良好的儿童不同。在这些研究中,在营养不良的儿童中普遍观察到变形菌的优势和肠道微生物群的低多样性,并被认为是肠道微生物群成熟的障碍。
此外,最近的一项研究揭示了肠杆菌科细菌与营养不良下的肠道黏膜免疫球蛋白 A (IgA) 反应之间存在机制上的相互关系,这会引发肠病并中断黏膜免疫的发展和健康微生物群的组装。
鉴于生态失调驱动的选择压力似乎干扰了微生物群的稳定性,变形菌随后借此机会增加了它们的适应性。微生物群落在异常代谢条件下的不稳定性已被解释为对定植的抵抗力受损。
当接种来自肥胖人类供体的培养细菌(“肥胖受体小鼠”)的无菌小鼠与携带来自瘦肉供体的细菌物种(低脂肪、高纤维饮食)的小鼠共同饲养时,它们被瘦肉有效定殖供体来源的细菌菌株及其肥胖表型得到改善。相比之下,瘦小鼠没有被来自肥胖小鼠的外源或外源细菌菌株定殖。
这一发现表明,生态失调的特点是传播能力减弱和对定植的抵抗力。鉴于 kwashiorkor 儿童的肠道微生物不成熟且富含肠道病原体营养不良被认为与对殖民化的抵抗力有缺陷有关。
总的来说,这一间接证据导致了这样一种观点,即肠道变形菌的扩张反映了宿主的能量不平衡和不稳定的微生物群。有趣的是,在非疾病状态下,如新生儿期和胃绕道手术后也观察到肠道微生物群落的不稳定结构和高丰度的变形菌。
与大多数细菌一样,在细胞外环境中对变形菌的初步识别是通过病原体识别受体 (PRRs) 发生的,PRRs 识别微生物相关分子模式 (MAMPs)——一个包括病原体相关分子模式 (PAMPs) 和危险相关分子模式的统称分子模式(DAMP)。
这些信号受体可分为三个家族:
尽管至关重要的是,只有 TLR 家族参与识别肠细胞表面的细菌配体。
存在于变形菌细胞表面的主要 MAMP 是脂多糖 (LPS) 和鞭毛蛋白,它们分别被 TLR4 和 TLR5 识别。其他参与细菌识别的TLR包括检测细菌脂蛋白的TLR2和检测未甲基化 CpG DNA 的细胞内受体 TLR9。
LPS 的产生和鞭毛组装是在原核生物中观察到的两个最动态的过程,这些结构组成的巨大差异反映在不同变形菌家族成员中观察到的先天免疫反应的强度和方向上。例如,弯曲杆菌和螺杆菌属LPS 与大肠杆菌LPS 的不同之处在于具有更长的酰基链和增加的链连接和脂质 A 磷酸基团的修饰。
在许多病原生物体(例如百日咳杆菌和幽门螺杆菌)中观察到脂质 A 锚中的一个或两个磷酸基团丢失,并且已被证明可提供对抗菌肽的抗性。
参与细菌识别的 TLR 的遗传变异与 IBD 相关。2010 年发表的一项荟萃分析表明,TLR4 Asp299Gly 和 Thr399Ile 变体都赋予白人患克罗恩病和溃疡性结肠炎的统计学显着风险。有趣的是,这两种变体都位于 LPS 结合域内 TLR4 的胞外域,并且被认为会影响蛋白质的二级结构。
这些功能变体的存在已被证明会影响 LPS 反应性,并使个体更容易受到革兰氏阴性菌的感染。证据还表明,这些遗传变异的存在可能会影响基础免疫状态。
因此,有理由推测,在 TLR4 基因变异的携带者中,在营养不良事件之前或期间发生的免疫反应改变,可能足以驱动 IBD 发生不可挽回的免疫反应改变。TLR9 中的遗传变异也与 IBD 易感性增加有关。证据不如TLR4那样令人信服,尽管这一警告可能反映了 TLR9 处理来自所有细菌的配体而 TLR4 反映革兰氏阴性菌易感性的事实。
变形菌门是肠道菌群中四个主要门(厚壁菌门、拟杆菌门、变形菌门和放线菌门)中最不稳定变化最快的门。变形菌门作为一线反应者,对环境因素(如饮食)反应敏感。
总的来说,迄今为止的许多研究都支持这样一个概念,即肠道中大量变形菌反映了生态失调或不稳定的肠道微生物群落结构。除了外源性肠致病性变形杆菌外,健康的哺乳动物肠道还含有数种属于该门的共生细菌,作为其天然肠道菌群。
这些细菌在比例较小时似乎是良性的,而在某些肠道环境下,它们会变成可引发炎症反应甚至代谢障碍。
然而,肠道中变形菌的长期富集可能代表不平衡的不稳定微生物群落结构或宿主的疾病状态。因此,时间顺序监测,而不是横断面研究,可能是根据肠道中变形菌的比例确定疾病风险的更好方法。
在健康肠道中,免疫系统严格调节其反应以维持与共生菌的共生关系。这种可能性表明存在正反馈循环。环境或宿主因素(例如低纤维饮食和急性或慢性炎症)破坏体内平衡,具有选择性并导致肠道内大量变形菌的生态失调。由于宿主无法保持共生的变形菌而导致变形菌的不受控制的扩张,在一小部分和微生物群落对定植的抵抗力降低的情况下,可以进一步促进炎症或外源性病原体的入侵。
因此,切断反馈回路的策略可能包括优化肠道微生物群和宿主之间的伙伴关系。鉴于大多数研究已经在与宿主生理学相关的背景下描述了微生物群落状态,因此对于未来的炎症和代谢干预治疗,首先需要判别变形菌的丰度以及是其是否不受控制扩张,另外需要确定变形杆菌大量繁殖的原因以开发有效的治疗方法。
主要参考文献:
Rizzatti G, Lopetuso LR, Gibiino G, Binda C, Gasbarrini A. Proteobacteria: A Common Factor in Human Diseases. Biomed Res Int. 2017;2017:9351507. doi: 10.1155/2017/9351507. Epub 2017 Nov 2. PMID: 29230419; PMCID: PMC5688358.
Mukhopadhya I, Hansen R, El-Omar EM, Hold GL. IBD-what role do Proteobacteria play? Nat Rev Gastroenterol Hepatol. 2012 Feb 21;9(4):219-30. doi: 10.1038/nrgastro.2012.14. PMID: 22349170.
Litvak Y, Byndloss MX, Tsolis RM, Bäumler AJ. Dysbiotic Proteobacteria expansion: a microbial signature of epithelial dysfunction. Curr Opin Microbiol. 2017 Oct;39:1-6. doi: 10.1016/j.mib.2017.07.003. Epub 2017 Aug 4. PMID: 28783509.
Shin NR, Whon TW, Bae JW. Proteobacteria: microbial signature of dysbiosis in gut microbiota. Trends Biotechnol. 2015 Sep;33(9):496-503. doi: 10.1016/j.tibtech.2015.06.011. Epub 2015 Jul 22. PMID: 26210164.
Shin NR, Whon TW, Bae JW. Proteobacteria: microbial signature of dysbiosis in gut microbiota. Trends Biotechnol. 2015 Sep;33(9):496-503. doi: 10.1016/j.tibtech.2015.06.011. Epub 2015 Jul 22. PMID: 26210164.
Rigottier-Gois L. Dysbiosis in inflammatory bowel diseases: the oxygen hypothesis. ISME J. 2013 Jul;7(7):1256-61. doi: 10.1038/ismej.2013.80. Epub 2013 May 16. PMID: 23677008; PMCID: PMC3695303.
谷禾健康
随着高通量多组学技术的快速创新推动,微生物群,尤其是肠道菌群失调已被明确与许多人类疾病有关,包括 2 型糖尿病和炎症性肠病。
多组学数据的综合分析,包括宏基因组学和代谢组学以及宿主指标的检测和细菌物种的分类,已经确定了许多与疾病相关的细菌和细菌产物。然而,深入了解微生物影响肠道健康的机制需要从关联拓展到因果关系。
目前对肠道微生物群对疾病因果关系的贡献的理解仍然有限,这主要是由于微生物群落结构的异质性、疾病进化的个体差异以及对将微生物群衍生信号整合到宿主信号通路中的机制的不完全理解。
最近,德国慕尼黑工业大学从事肠道菌群和营养研究的Haller 教授团队在《Nature reviews gastroenterology & hepatology》 (自然评论胃肠病学和肝病学)发表评论文章,系统讨论了目前已知的炎症和代谢紊乱相关微生物组的特征和认知,并讨论提高对其作用机制理解的困难所在。
在这里我们将文章整理与大家分享。

关键信息
1、肠道菌群组成的改变和细菌衍生代谢物经宿主加工后的变化与 IBD 和 T2DM 相关,并提供了共同的潜在致病机制。
2、益生菌与 IBD 或 T2DM 之间的因果关系已通过无菌小鼠实验和综合多组学研究明确。
3、对于疾病特异性生物标志物发现的挑战,包括确定观察到的变化的因果关系,了解它们在疾病机制中的功能以及肠道微生物群的地理和种族差异。
4、特定细菌菌株、其编码基因和代谢副产物的大数据细化、测试和验证对于识别疾病生物标志物是必要的。
文章内容
人体消化道含有一系列复杂的微生物,包括细菌、古细菌、病毒和真菌。由于消化道及其微生物组被认为位于免疫和代谢过程的交叉点,本文重点关注炎症性肠病 (IBD) 和 2 型糖尿病 (T2DM) 作为微生物群相关疾病的范例。
IBD 和 T2DM 都被认为是多因素疾病,随着工业化的进展其发病率在全球范围内呈上升趋势。病因涉及遗传易感性、环境诱因和城市生活方式相关因素的复杂相互作用。
在这种共同的背景下,代谢疾病(如 T2DM)的另外特征是肝脏、脂肪组织、肌肉、胰腺和肠道的慢性亚临床炎症,而炎症性胃肠道疾病,如克罗恩病(CD)和溃疡性结肠炎(UC) ,也与炎症驱动的代谢改变有关。
环境触发因素的重要性(肠道菌群)
全基因组关联研究已经确定了大量的遗传变异与 T2DM (143 位点) 或 IBD (>240 位点)的易感性增加相关。然而,这些变异共同解释了这些疾病的一小部分遗传性:T2DM < 10 %,UC < 15 % 和 CD < 50 % 。这种情况表明环境触发因素的重要性,特别是肠道微生物组,作为这些疾病病因的主要贡献者。对大型人群研究和 IBD 或 T2DM 患者队列的多项分析已经确定了与特定疾病表型、复发风险和治疗反应相关的微生物组特征。
IBD 和 T2DM 都与特征性微生物改变有关,特别是随着有益微生物的减少和病原菌的增加而降低群落多样性。尽管它们的病理学不同,IBD 和 T2DM 有几个共同的机制特征。T2DM 的代谢特征伴随着慢性低度炎症和肠道屏障的破坏,IBD 患者的复发性炎症发作与细胞和全身水平的代谢改变共同发生。
这些复杂疾病的治疗仍然具有挑战性,但粪便微生物群移植(FMT) 的对照试验已显示出对T2DM和IBD的临床疗效,包括UC以及较轻的 CD。
FMT对炎症、免疫和代谢疾病有效果但存在差异
FMT 的临床试验还提供了肠道菌群与其他炎症、免疫或代谢疾病之间存在因果关系的证据。例如,FMT 在治疗大约 90% 的艰难梭菌(以前的艰难梭菌)感染患者方面非常有效并已被评估为治疗肥胖和移植物抗宿主病。
在四项随机临床试验中,FMT 在 28% 的 UC 患者中诱导了临床缓解。但很少有临床试验检查过 FMT 在 CD 患者中的疗效,而且结果相当不同。
在一项对 174 名接受 FMT 治疗的 CD 患者进行的研究中,20% 的患者获得了临床缓解,总体而言,43% 的患者获得了临床缓解。
一项单独的随机对照试验发现 FMT 对 CD 患者的临床缓解率没有影响,但供体微生物群的植入增加与维持缓解有关。相反(尽管大量研究表明,特定的菌群失调或特定的微生物群谱与代谢紊乱有关),FMT 对代谢性疾病患者有益的证据尚不明确。具有里程碑意义的研究表明,从较瘦、健康的捐赠者那里接受 FMT 的代谢综合征患者的代谢改善以及肠道微生物组的有益变化。然而,这些影响是不一致和短暂的,这可以通过供体微生物群的有限移植或基线时供体粪便微生物多样性的变化来解释。
有趣的是,口服 FMT 后补充低发酵性纤维可改善肥胖和代谢综合征患者的胰岛素敏感性、增加微生物多样性,并延长供体微生物定植。这些数据强调了微生物调节疗法在逆转代谢功能障碍中的价值。
与这些发现一致,来自代谢受损的肥胖供体的 FMT 会暂时恶化代谢综合征受体的胰岛素敏感性,而胃旁路术后健康供体的 FMT 会导致代谢综合征受体的胰岛素敏感性略有增加。
几项大型队列研究(表 1、表2)通过分析 IBD 患者的肠腔和黏膜微生物群落,研究了肠道微生物群的改变。
总体而言,活跃期IBD 与某些菌群的数量过多有关,如:
肠杆菌科Enterobacteriaceae
梭杆菌属Fusobacterium
咽峡炎链球菌Streptococcus anginosus
肠球菌Enterococcus
巨球菌Megasphaera
弯曲杆菌Campylobacter
Gammaproteobacteria
Deltaproteobacteria
相反,IBD 与有益菌群的缺失有关,例如:
Faecalibacterium prausnitzii
Christensenellaceae
Collinsella
Roseburia
Ruminococcus
其他产丁酸盐的细菌
在我们检测的炎症性肠病的菌群报告中也发现,炎症性肠病风险高的人群中,炎症水平很高,肠杆菌科Enterobacteriaceae,梭杆菌属Ruminococcus gnavus偏高,而Faecalibacterium prausnitzii和Roseburia丰度普遍降低或者缺乏。
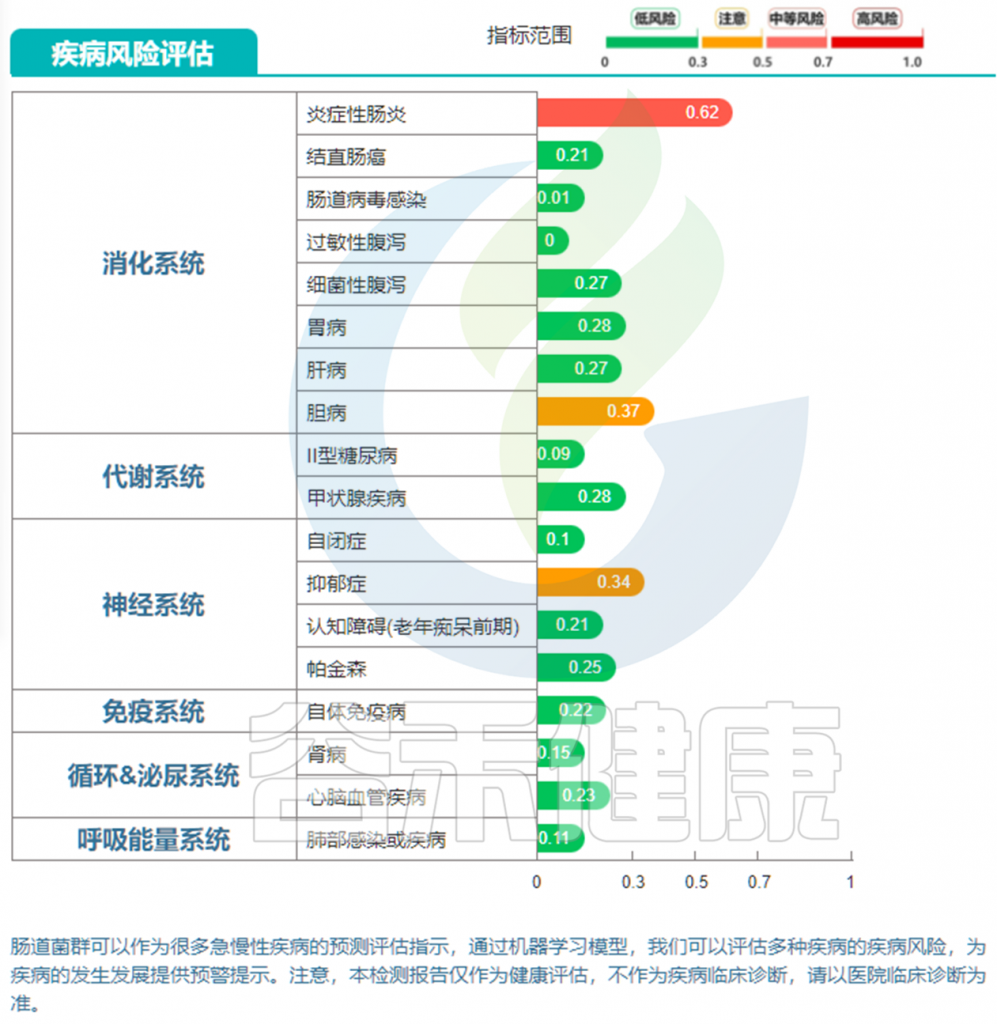

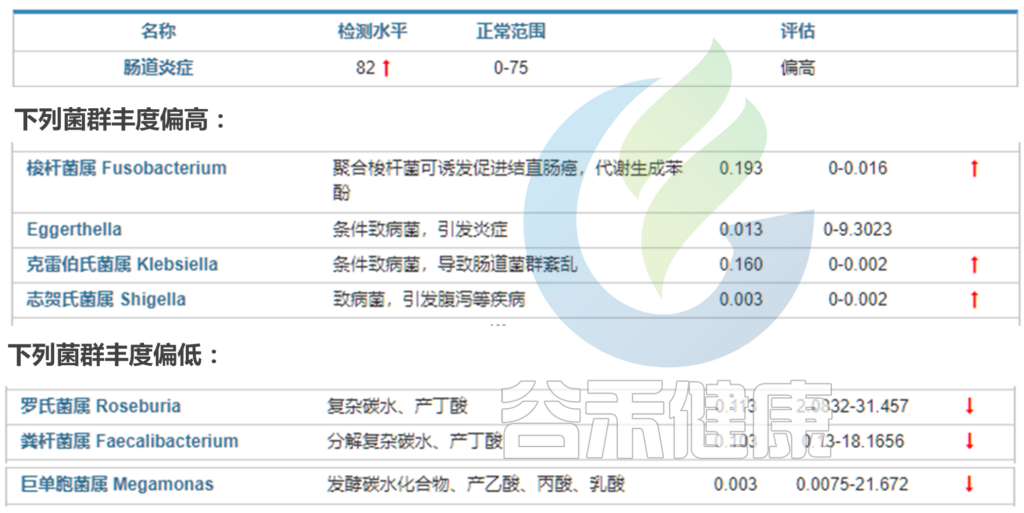
< 选自:谷禾肠道菌群健康检测报告 >
菌群代谢功能
粪便样本的宏基因组学为 IBD 中发生的功能失调和代谢途径的扰动提供了更全面的观点。这些研究表明,参与含硫氨基酸合成、核黄素代谢、谷胱甘肽转运蛋白、氧化应激和营养转运的代谢途径均被上调。
一项能够将微生物群落分解到物种内单个菌株水平的研究显示,与健康对照相比,IBD 或肠易激综合征 (IBS) 患者粪便样本中致病菌的菌株多样性增加,而有益微生物的菌株多样性降低。深入分析表明,219个类群(包括152种)与CD相关,102个类群(包括93种)与UC相关。
CD的主要特征是属于毛螺菌科和瘤胃球菌科的分类群减少和属于肠杆菌科的分类群增加,而对于UC观察到属于拟杆菌科的分类群减少和属于毛螺菌科的分类群增加。与这种异质性一致,在不同的 IBD 研究中仅存在少数物种的共同变化,这表明尽管疾病表型和病程相似,但在 CD 患者群体中仍存在个体间差异。
IBD和肠道菌群的因果关系探究
肠道微生物群在 IBD 中的致病作用的首批临床证据之一源于实验表明,从 CD 患者的小肠发炎段转移粪便流可改善疾病症状。粪便流的恢复和新末端回肠术后暴露于肠腔内容物会诱发炎症,这表明肠道微生物群会引发 CD的术后复发。此外,抗生素治疗对活动性 CD 患者亚群的疗效强调了肠道细菌和 IBD 之间的因果关系。
急性和慢性肠道炎症小鼠模型的机制研究为微生物失调与 IBD 之间因果关系的提供了进一步证据。例如,将IBD 患者的菌群移植到无菌受体小鼠,会将IBD 表型转移到无菌小鼠中。而具有 IBD 遗传易感性的小鼠在无菌条件下不会发生自发性炎症。
免疫响应
IBD 发病的遗传易感小鼠的失调菌群,能够将这种疾病症状转移到无菌受体小鼠。将 IBD 微生物群转移到无菌的野生型小鼠体内会导致肠道 T 细胞反应失衡,肠道 T 辅助 17 (TH17) 细胞和 TH2 细胞数量增加,RORγt +数量减少。同样,肠道微生物群的人类共生细菌脆弱拟杆菌对无菌小鼠的定植诱导CD4 + T 细胞转化为产生IL-10的FOXP3 + T reg细胞,这表明微生物群驱动的存在IBD 的发病机制。
在 T2DM 中也发现了几种细菌类群的丰度变化很大。
例如,据报道,2型糖尿病患者中下列菌相对丰度增加:
大肠杆菌E. coli、
韦荣氏菌属Veillonella、
布劳氏菌属Blautia、
厌氧菌属Anaerostipes、
乳杆菌属Lactobacillus、
粪杆菌属Faecalibacterium、
梭状芽胞杆菌属Clostridiales(等)
相反,下列菌丰度降低:
拟杆菌属Bacteroides
双歧杆菌属Bifidobacterium、
副拟杆菌属Parabacteroides、
颤螺菌属Oscillospira
可降解粘蛋白的阿克曼菌Akkermansia muciniphila
2019 年发表的一项宏基因组和宏蛋白质组学研究分析了来自 254 名中国个体的粪便样本中的肠道微生物群组成和功能,其中包括 77 名未接受治疗的 T2DM 患者、80 名糖尿病前期患者和 97 名葡萄糖耐量正常的对照个体。与代谢健康的对照组相比,T2DM 患者和前驱糖尿病患者的梭菌目Clostridiales细菌丰度较低,而埃氏巨球形菌Megasphaera elsdenii的丰度较高。
菌群代谢功能
在 T2DM 患者和糖尿病前期患者的微生物组中观察到功能差异。与对照个体相比,糖尿病前期个体的肠道微生物群显示出与糖磷酸转移酶系统、细菌分泌系统和氨基酸的 ATP 结合盒 (ABC) 转运蛋白有关的途径富集。这些发现表明,在糖尿病前期患者转变为 T2DM 之前,可以检测到肠道微生物组的疾病特异性变化。
环境因素影响
细菌种类和代谢基因簇谱的差异已被用于确定一组具有正常葡萄糖耐量或 T2DM 的个体的糖尿病状态。然而,包括地理位置、种族、健康状况和用药史在内的混杂因素导致在识别与 T2DM 相关的微生物变化方面不同研究存在不一致。
因果关系研究
几项研究提供了肠道微生物群特定成员与 T2DM 发病机制之间因果关系的证据。例如,A. muciniphila属于在人类和小鼠研究中显示对代谢紊乱具有保护作用的分类群。有趣的是,补充益生元使A. muciniphila的丰度正常化并改善了人类的代谢健康。同样,对喂食高脂肪饮食的小鼠施用A. muciniphila可逆转其增加的脂肪量、代谢性内毒素血症、脂肪组织炎症和胰岛素抵抗。
此外,产生丁酸盐的细菌Anaerobutyricum soehngenii(以前称为Eubacterium hallii菌株 L2-7)显示出丰度增加,这与来自瘦供体的FMT受体的外周胰岛素敏感性改善相关。
对T2DM 患者A. soehngenii菌水平进行管理,在治疗 4 周后改善了外周胰岛素敏感性,这些益处伴随着微生物群组成的改变和胆汁酸代谢的变化。
奇怪的是,特定的细菌分类群在 IBD 和 T2DM 中表现出相似的变化,这表明免疫介导和代谢疾病的共同特征导致微生物群的相似适应。
下列菌丰度下降:
梭状芽孢杆菌属 Clostridium spp.
粪杆菌属 Faecalibacterium
瘤胃球菌属 Ruminococcus
阿克曼氏菌属 Akkermansia
柯林斯氏菌属 Collinsella
罗斯氏菌属 Roseburia
下列菌丰度增加:
肠杆菌科 Enterobacteriaceae
大肠杆菌 E. coli
具核梭杆菌 Fusobacterium nucleatum spp.
这为定义疾病特异性标志物提出了挑战(下图)

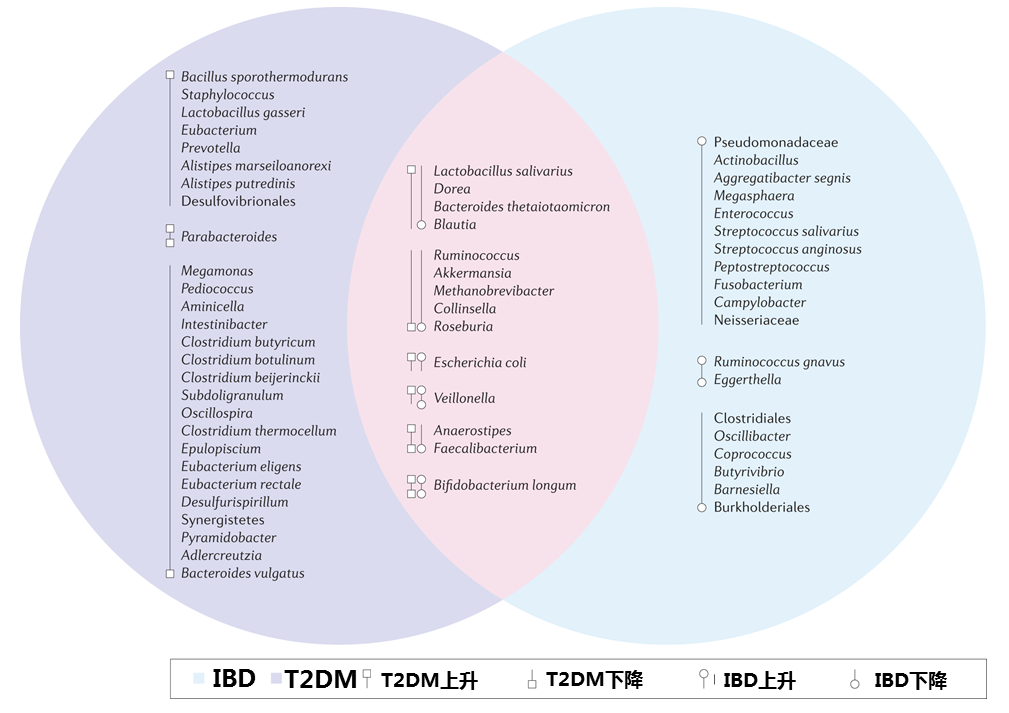
Metwaly et al.,Nat Rev Gastroenterol Hepatol. 2022.
例如,一项针对 2,045 名 IBD 患者的研究的作者确定了 8 个分类群的特征,包括克里斯滕森菌科Christensenellaceae和梭杆菌属Fusobacterium的未知成员,它们可以区分 CD 患者和健康个体。
然而,Christensenellaceae 的丰度增加与低 BMI 和体重减轻有关,这是一种在 IBD 患者中经常观察到的分解代谢状况。同样,梭杆菌的富集被认为是转移性结直肠癌患者预后不良的标志。鉴于 IBD 患者患结直肠癌的风险增加,这一提议的微生物组特征可能是一种附带现象,与潜在的疾病机制没有因果关系。
对来自 132 名个体的微生物组、代谢组和转录组数据集的综合网络分析确定了连接关键细菌分类群(即F. prausnitzii 、未分类的Subdoligranulum、Alistipes、大肠杆菌、Roseburia)的某些代谢物(短链脂肪酸、辛酰肉碱和几种脂质)。有趣的是,有和没有 IBD 的研究参与者之间的差异在粪便代谢组中,比在粪便宏基因组、粪便宏转录组或粪便蛋白质组中更明显。
在综合个人组学分析研究 (iPOP) 中,血浆代谢物与来自 106 名个体的纵向样本中的胰岛素抵抗密切相关,这表明宿主代谢组和肠道微生物组之间的相互作用在胰岛素抵抗个体中受到干扰。
许多研究调查了微生物改变作为疾病生物标志物的效用,特别是在 CD 或 UC 患者中。最初试图定义可以作为疾病活动指标的单一细菌分类群。
例如,F. prausnitzii (一种产生丁酸盐的厚壁菌)在 CD患者中被耗尽。CD 患者回肠黏膜活检样本中这种细菌丰度的降低与回肠切除术后内镜下复发风险的增加密切相关。相反,粘附的侵袭性大肠杆菌丰度增加与回肠 CD相关。
然而,由于大多数细菌物种由许多个体菌株组成,这些菌株可以表现出相当大的基因组和蛋白质组变异,因此菌株多样性具有重要的功能,特别是在确定致病性方面。
例如,R. gnavus和大肠杆菌的亚种都与 IBD 的严重程度增加有关。此外, R. gnavus的一个特定亚种表明,来自 IBD 患者的粪便样本中丰度增加含有菌株特异性基因(与改善的细菌定植有关)。这些基因涉及诸如氧化应激反应、细菌粘附、铁获取和宿主粘液利用等功能。同样,不同的脆弱拟杆菌菌株表现出功能差异,导致 IBD 相关小鼠模型中 IgA 诱导水平不同。这些遗传上不同的脆弱拟杆菌菌株在接种到受体小鼠时也表现出不同的致结肠和免疫调节作用。在一项旨在定义用于监测 IBD 患者疾病活动的关键菌群失调的研究中,使用定量 PCR 计算了F. prausnitzii和大肠杆菌的绝对丰度比(也称为 F-E 指数)。F-E 指数的使用提高了 UC 和 IBS 患者与 CD 患者的区分,并有助于区分结直肠癌与其他肠道疾病。然而, F-E 指数无法区分 IBD亚型,这表明单一分类群指标在分类疾病亚型方面的效用有限。
大规模生物标志物分析
基于微生物特征的判别模型
几项研究已经使用机器学习算法来验证横截面和纵向患者队列中复杂的微生物组特征。
例如,2017 年发表的一项研究使用 16S rRNA 微生物群来分析来自大量 IBD 患者和没有 IBD 的对照个体的粪便样本。研究人员使用序列聚类算法根据八种细菌类群的丰度来识别 CD 特异性微生物特征。
此外,另一组研究表明,基线肠道微生物组组成的特征可以预测 IBD 患者在治疗开始后14周对抗整合素治疗的反应。由深度神经网络生成的微生物组特征的受试者工作特征曲线 (AUC) 下面积为 0.87,而基于临床协变量的模型的 AUC 为 0.62。研究小组还评估了微生物组特征作为 IBD 和 T2DM 生物标志物的效用。
在一项研究中,检查了 29 名接受过自体造血干细胞移植的 CD 患者的独特队列中的疾病活动性和对治疗的反应。来自人类供体和人源化小鼠的微生物组和代谢组风险概况的整合将疾病结果的预测模型的性能从 AUC 0.79 提高到 0.96,并确定了与硫代谢相关的疾病相关细菌和代谢物网络。
这些发现听起来很有前景,但重要的是要承认微生物组风险概况是基于来自前瞻性队列研究中的人群或患者组的预测模型,因此比起对于个人的预测结果,对于相似患者组(人群或队列)可能更准确。重要的是记住,预测的风险可能不会直接转化为个体患者,这可能是由于在异质环境中风险概况的普遍性有限。
不忽略混杂变量
另一项研究调查了以德国人群为基础的 1,976 人队列中的代谢健康和肠道微生物群的昼夜节律性。粪便微生物群分析确定了 13 个微生物分类群的风险特征,这些分类群显示 T2DM 患者的昼夜节律性受到破坏。基于这种心律失常风险特征的预测模型成功识别出有患 T2DM 风险的个体,当模型中包含 BMI 时,AUC 为 0.78。
这些例子为微生物组特征在用于诊断和治疗目的的生物标志物发现中的作用提供了证据。然而要注意,生态失调指数不是独立的测量值,需要整合到额外的宿主衍生数据和临床数据中。这些指标的标准化和验证需要大规模究研,包括对潜在生物标志物的纵向评估,并考虑可能的混杂变量,例如饮食、年龄、种族、病史和最后的排便时间,所有这些因素都会影响微生物组的改变。
在寻找疾病生物标志物时,代谢物作为疾病活动的最接近指标,并且与作为疾病机制基础和调节疾病机制的调节信号密切相关。事实上,代谢组和微生物组都随着饮食、环境、衰老和整体健康状况等内源性和外源性因素而波动。
许多研究报告了 IBD或 T2DM患者的肠道代谢物谱的显着变化。
例如,已在 IBD 患者的粪便代谢组中发现中链脂肪酸(如戊酸和己酸水平降低)和 B 族维生素水平降低。相反,据报道,成人和儿童 IBD 患者的粪便和血清中氨基酸、胺和肉碱的含量分别增加。
一项具有里程碑意义的研究结果表明,代谢物分析可以区分 IBD 患者和健康个体。该报告之后有许多其他人一致表明 IBD 患者的代谢物表型与健康个体的不同。有趣的是,代谢物分析还可以区分不同形式的 IBD,例如 CD 和 UC,并且可以进一步将 CD 患者分类为患有回肠或结肠炎症。同样,T2DM 患者的代谢物分析表明代谢途径的活性发生了改变。
在多份报告中,支链和芳香族氨基酸(如亮氨酸、异亮氨酸、缬氨酸、苯丙氨酸、酪氨酸和色氨酸)的血清水平与胰岛素抵抗、肥胖和发生 T2DM的风险相关。
T2DM 患者的代谢物分析还揭示了特定细菌代谢物水平与疾病发作之间的强关联。
例如,色氨酸代谢途径包括几个候选代谢物生物标志物,这些生物标志物由于与人类和小鼠研究中炎症和代谢疾病的发展相关而引起了研究关注。色氨酸是一种从饮食中获得的必需氨基酸,主要在小肠中吸收,尽管一小部分在结肠中分解代谢为吲哚代谢物。
一项纵向队列研究证实,在 213 名中国个体(包括 51 名继续发展为 2 型糖尿病和 162 名保持代谢健康的个体)中,高基线空腹血清色氨酸浓度与患 T2DM 的风险增加有关。此外,色氨酸水平作为生物标志物的预测能力与五种现有氨基酸在区分患有和未患 T2DM 的个体方面的预测能力相当 。
值得注意的是,先前的报告表明,几种氨基酸的血清水平可以以不同的准确性识别来自不同人群的 T2DM 患者。例如,苯丙氨酸和缬氨酸在美国人群中表现最好,而酪氨酸在南亚人群中最准确。这些发现指出了识别区域特异性生物标志物在实现最佳诊断准确性方面的重要性。
有价值的生物标志物必须为从临床信息中获得的分类能力提供额外的分类能力。因此,粪便生物标志物是粘膜疾病诊断标志物的明显来源,因为粪便流与肠粘膜直接接触。
钙卫蛋白
粪便钙卫蛋白是一种可在粪便中检测到的粒细胞衍生的细胞溶质蛋白,由于炎症严重程度与粪便钙卫蛋白水平之间的相关性强,它是最广泛使用的用于炎症性疾病的粪便生物标志物。
两份报告证实了粪便钙卫蛋白水平检测内窥镜炎症的能力,报告的敏感性为70-100% ,特异性为44-100%。这些值的广泛范围可以通过每项研究中应用的截止阈值的变化来解释。
然而,粪便钙卫蛋白水平升高并不是 IBD 特有的,而是反映了肠道炎症状况,这也与其他肠道和代谢疾病(包括 IBS、胃肠道恶性肿瘤、肥胖和 T2DM)有关。
例如,对来自 1,792 个人的粪便样本中肠道微生物群的鸟枪宏基因组分析能够区分 IBD 和 IBS,与单独的粪便钙卫蛋白水平 (AUC) 相比,机器学习算法显着提高了这些预测模型的准确性 (AUC 0.91>0.80)。
重要的是,具有最高预测准确度 (AUC 0.93) 的模型包括粪便钙卫蛋白水平以及前 20 个选定分类群的宏基因组分析。这些结果表明,临床和微生物生物标志物的整合提高了诊断的准确性。这种综合方法已被用于预测 IBD 患者对治疗的反应。
在这项研究中,基线临床数据(包括血清学、内窥镜和临床生物标志物)不足以预测缓解(AUC 0.62),而添加分类学和代谢谱将诊断能力分别提高到 AUC 0.72 和 AUC 0.74。
此外,仅粪便钙卫蛋白水平就能够区分储袋炎患者和无储袋炎患者 (AUC 0.63)。相比之下,微生物组物种模型(有或没有粪便钙卫蛋白水平作为额外的预测因子)实现了 0.78 的 AUC,证实微生物分析在识别储袋炎方面具有优于仅粪便钙卫蛋白水平的诊断性能。
用于诊断 T2DM 的葡萄糖代谢受损的血清学生物标志物包括空腹血糖水平、75g口服葡萄糖激发后 2 小时血糖水平(口服葡萄糖耐量试验)和糖化血红蛋白水平。
一项使用来自两个瑞典队列136数据的研究确定了预测 T2DM 进展的血清学和微生物组生物标志物的组合。
在这项研究中,多变量分析表明胰岛素抵抗程度与微生物组变异之间存在很强的相关性。
有趣的是,使用基于微生物组的机器学习模型来区分验证队列中胰岛素抵抗程度最低和最高的个体的 AUC 为 0.78,这表明肠道微生物群是 T2DM 进展的重要调节因子。
事实上,尽管已经为 T2DM 提出了广泛的诊断生物标志物,但它们中的大多数未能捕捉到这种疾病的复杂性或掌握微生物和代谢的变化。在这方面,已将代谢物生物标志物与已确定的临床风险因素结合使用,以显着改善疾病分类。
微生物特征
了解单个细菌类群(病原菌)和/或复杂微生物群落(生态失调)变化的功能作用和特异性对于解决IBD或T2DM中微生物-宿主相互作用的发病机制至关重要。在这种情况下,肠道微生物组的功能改变可能代表宿主适应的结果。

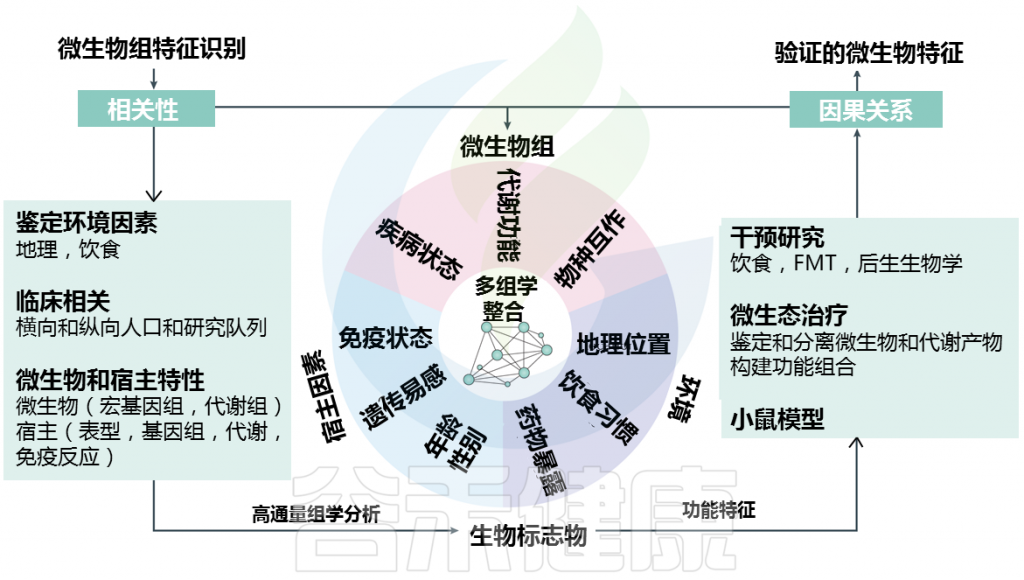
Metwaly et al.,Nat Rev Gastroenterol Hepatol. 2022.
肠道微生物群与多种疾病之间存在因果关系,已在小鼠实验中得到证实。无菌小鼠模型可以选择性地用单一细菌菌株、最小细菌聚生体或来自人类粪便或其他供体材料的定义复杂的肠道微生物生态系统进行定植,以研究它们对宿主表型的影响。在 IBD 中,无菌小鼠模型的单菌株定植有多种共生细菌,包括大肠杆菌、粪肠球菌、普通拟杆菌和Bilophila wadsworthia使我们能够了解疾病引发或保护的一些潜在机制。已有的研究工作表明,肠道菌群是驱动结肠炎小鼠模型炎症所必需的,而这些细菌与 CD患者的复发风险相关。肠道微生物群移植到无菌小鼠体内导致了几种疾病状态,从而揭示了与炎症有关的共享功能代谢途径。同样,以前的工作表明葡萄糖耐量和胰岛素抵抗受肠道微生物组组成的影响,已通过一系列 FMT 研究得到证实。
在过去的二十年里,人类和小鼠研究的证据揭示了肠道微生物组在炎症和代谢疾病(如 IBD 和 T2DM)的发病机制中的基本作用。肠道微生物生态系统结构和功能的变化(失调),与这些疾病患者的疾病活动、复发风险或对治疗的反应有关。然而,大多数这些疾病的复杂性和多因素发病机制,以及人类研究中存在多种混杂因素,依然对微生物组特征在诊断、预测预后和治疗决策中的临床应用提出重大挑战。
当前的微生物组研究不仅仅局限于描述微生物群落结构和疾病关联,还在了解肠道菌群在复杂慢性病发病机制中的致病作用方面取得进展。预计这些努力将增强微生物组建模,并推进可用于临床环境的基于菌群特征和/或疾病风险的模型开发。
参考文献:
Metwaly A, Reitmeier S, Haller D. Microbiome risk profiles as biomarkers for inflammatory and metabolic disorders. Nat Rev Gastroenterol Hepatol. 2022 Feb 21. doi: 10.1038/s41575-022-00581-2. Epub ahead of print. PMID: 35190727.
谷禾健康
铁 (Iron)作为人体不可或缺的元素之一,在氧气运输,新陈代谢和免疫防御中起着基本作用。铁元素的良好调控是人体健康的保障,过多过少都会对人体产生不利影响。铁稳态的失调与各种疾病的发生和发展息息相关:铁缺乏会导致宿主发育迟缓,免疫低下,而铁过载更易引发炎性反应和代谢问题, 还可能与癌症的发生发展密切相关。
在人类中,小肠作为宿主体内铁的主要吸收场所,大约每天吸收2-3mg铁,但是在一些病理条件下,小肠并不能完全将食物中的铁吸收,而相当一部分铁进入结肠中与肠道菌群发生密切的交互作用,并影响肠道菌群的“生态系统”,从而进一步调节宿主的健康和代谢。
自法国国家农业研究院与法国国家健康与医学研究院(INSERM)的研究人员首次发现肠道菌群如何影响肠道内铁元素的转运与储备成果后,多项研究表明,铁失衡会导致肠道菌群的改变,进而改变微生物多样性,增加病原体丰度并诱导肠道炎症的发生发展。
谷禾在多年的肠道菌群研究和检测实践中,也发现饮食中的铁水平是导致肠道菌群改变的重要因素。我们基于机器学习算法,建立了预测模型,可以预测评估膳食摄入和铁的菌群代谢的总体水平,这有助于避免缺铁和铁过量引起的肠道菌群失调及其可能导致的宿主健康损害和疾病风险。
铁和微生物组之间相互作用

Botta A, et al., J Lipid Atheroscler. 2021
铁是人类必需的营养素,在环境中含量非常丰富,并参与了许多生物过程,如氢气的产生、呼吸和DNA 生物合成。它还在宿主细胞内的许多代谢途径中起到辅助因子的作用。
在人类中,由于没有排泄铁的途径,小肠上皮细胞对铁的吸收是一个非常严格的调节过程。
吸收效率取决于饮食中铁的潜在可用性,并受生理铁需求的调节,包括体内铁储存,铁调素在控制吸收中起核心作用。
膳食铁大致分为两种类型,非血红素铁和血红素铁。两种形式的膳食铁都有单独的肠细胞吸收途径:

这里主要关注的是非血红素铁(口服铁通常以非血红素铁的形式给予)。
肠上皮细胞对非血红素铁的吸收

日常生活中,缺铁的常见症状包括:
一般我们常见的缺铁,主要是以下几个原因:
这很好理解。我们的身体不能制造铁,需要从食物中获取。如果你每天摄入的铁量没有达到身体需要的量,就会出现缺铁。
快速生长会增加铁需求,因此儿童、孕妇和哺乳期女性更可能缺铁。此外,进行耐力锻炼的人更容易患低铁症。
出血和失血会增加铁的流失,包括:月经出血、分娩、溃疡、痔疮、因受伤或手术而出血、献血等。长期使用消炎药(布洛芬、萘普生、双氯芬酸)会增加肠道出血的可能性。
需要注意的是,缺铁性贫血的一个常见且常被忽视的原因是月经过多。随着时间的推移,这种缓慢的血液流失通常会导致铁流失过多。
在慢性炎症性疾病中也会出现缺铁,例如自身免疫性疾病、慢性感染、慢性肾病或癌症。这被称为慢性病性贫血。
因为铁对病原体和癌细胞的生长很重要,所以当发生感染或炎症时,身体会试图通过锁定铁来抑制病原体或恶性细胞的生长。
受感染或炎症影响的组织会释放降低铁血水平的细胞因子,从而导致贫血的发展。
消化系统的疾病会降低铁的吸收,包括:
乳糜泻、炎症性肠病、胃炎、幽门螺杆菌感染、小肠细菌生长过度等,此外,减肥手术也会减少营养吸收,包括铁。
铁吸收不足的其他原因包括大量摄入抑制铁吸收的食物或药物,包括:植酸盐(全谷物、豆类)、多酚(茶、咖啡、葡萄酒)、抗酸药、H2受体阻滞剂、四环素或消胆胺等药物等。还有一个很重要的我们可能会忽略的环节,就是菌群。
细胞铁浓度是感染性的关键决定因素之一。肠道病原体在宿主细胞中的存活可能部分取决于宿主铁的状态。铁也可以促进肠道病原体的复制和毒力,例如沙门氏菌属、志贺氏菌属和弯曲杆菌属。
利用铁载体获取铁的一些细菌还包括如:
大肠杆菌、铜绿假单胞菌、肺炎克雷伯菌、金黄色葡萄球菌和结核分枝杆菌。
这些病原菌的定植会与宿主进行铁的竞争吸收,同时诱发肠道炎症,改变肠腔环境,影响菌群构成,进一步导致缺铁加剧。

大多数细菌都依赖于铁的存在来进行呼吸和各种代谢过程。在细菌内部,铁在生长和增殖中起着至关重要的作用,例如,某些细菌蛋白质和酶的正常功能需要铁。此外,铁还可以调节某些毒力因子的表达。
铁浓度的波动会产生病理影响,对肠道微生物群组成产生负面影响。铁的波动有两种情况,过多或者缺乏,接下来我们逐一来看铁过量和缺乏会对菌群造成什么影响。
宿主铁稳态的改变可能会影响肠道的管腔铁含量,从而影响肠道菌群的组成。在无菌小鼠中,铁转运蛋白表达减少两倍,细胞铁含量较低,在移植肠道细菌定植后,上皮细胞利于铁的能力增加,细胞内铁含量增加。
铁过量
肠道中富含铁的环境有利于变形菌。对儿童的研究表明,过量的铁会导致炎症和病原菌的生长。这些病原菌可能会诱发炎症性肠病或结直肠癌。铁的强化增加了粪便钙卫蛋白的水平,显示了肠道的炎症。
患有铁过载综合征(包括血色素沉着症和难治性贫血)的人更容易受到细菌感染,包括:
耶尔森菌属Yersinia
单核细胞增生李斯特菌Listeria monocytogenes
创伤弧菌Vibrio vulnificus
膳食铁过量摄入可影响大鼠正常的生长发育,并引起小肠粘膜炎性损伤。过量铁摄入可引起大鼠肠道菌群失调,肠道菌群丰度有所降低,其中乳酸杆菌、双歧杆菌降低,血清中肿瘤坏死因子和内毒素水平升高可能与肠道菌群紊乱有关。
铁缺乏
当铁水平下降时,也会对肠道微生物群组成产生影响,诱发肠道感染。缺铁会抑制细菌细胞繁殖过程,从而损害细菌生长。
在啮齿类动物模型中,缺铁导致微生物群组成的显著重组,微生物多样性降低。
在铁含量非常低的条件下(0.9 mg Fe/L),Roseburia,肠杆菌减少,丁酸盐水平也降低,而Lactobacillus增加。此外,低铁条件下生长的Roseburia gutis优先产生乳酸而不是丁酸盐。
图 铁和炎症之间相互作用
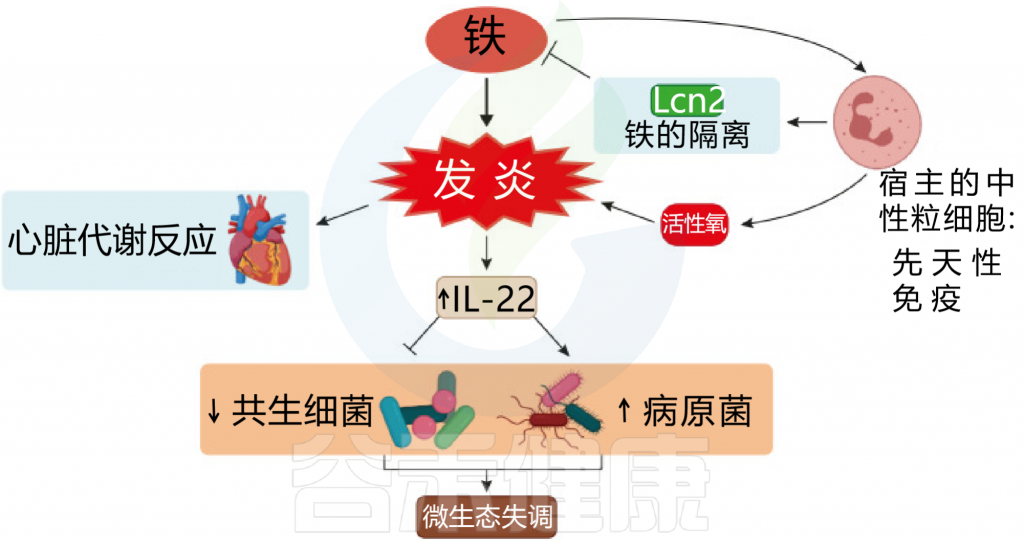

Botta A, et al., J Lipid Atheroscler. 2021
铁补充
铁的补充和强化对人体肠道细菌组成有不同的影响。
接受低剂量(0-10 mg Fe/天)或高剂量(大于60 mg Fe/天)铁补充剂的孕妇在肠道菌群任何分类水平上均没有显著差异。
接受含铁微量营养素粉(12.5 mg/天)的肯尼亚婴儿的病原体丰度增加。在健康、非贫血的瑞典婴儿中,食用高铁配方奶粉(6.6 mg Fe/天)45天不会增加病原菌的生长;然而,双歧杆菌的相对丰度降低。
但是,值得注意的是在同一项研究中,与服用高铁配方奶粉的婴儿相比,服用铁滴剂(6.6 mg Fe/天)的婴儿的乳酸菌种类相对丰度较低。尽管剂量相当,但这项研究表明,给药形式(即配方奶粉与滴剂)对肠道微生物组成的影响存在差异。
此外,由于铁滴剂会导致乳酸杆菌的减少,乳酸杆菌是重要的共生细菌,因此铁滴剂可能会增加感染的易感性。
在疟疾流行地区补充铁被证明会增加严重不良事件的发生率,包括因疟疾和其他感染而住院。疟疾感染恶化的潜在机制被认为是过量铁抑制铁转运蛋白(ferroportin,防止红细胞中铁过量,防止感染)。
口服铁补充剂和强化对 4-59 个月儿童腹泻发病率的影响。在19项研究中发现,12项研究中铁不会影响腹泻发病率,在其余的研究中,四项记录的腹泻发病率显着增加,三项记录在特定亚群中的增加。
为什么有些研究表明补铁导致腹泻增加?
有两个主要假设可以解释有时观察到的效果。
首先,铁可以在肠道内产生活性氧,从而导致肠道损伤,并导致炎症性腹泻。这一假设得到了体外实验的支持,在体外实验中,铁暴露后,肠上皮细胞失去了完整性。
其次,铁可以改变肠道细菌的组成,创造一个更具炎症性的环境。
口服铁剂后结肠腔内的微生物和代谢变化
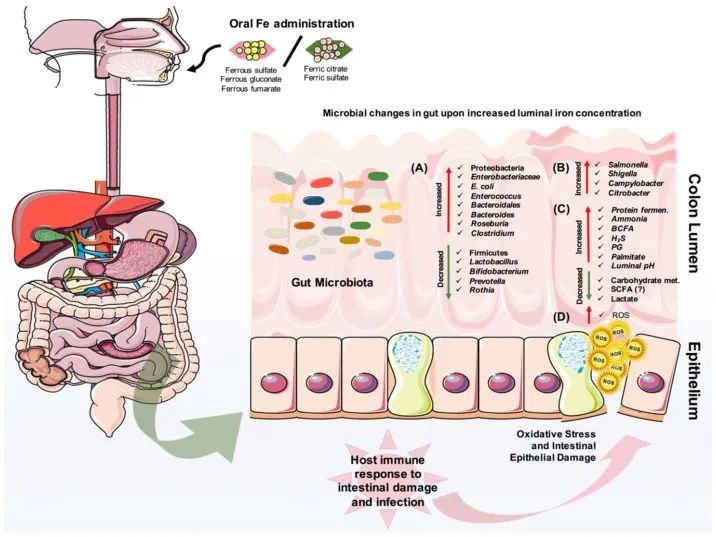
Yilmaz B, Li H. Pharmaceuticals (Basel). 2018
口服铁对肠道微生物组成的改变有直接影响。
(A)它可以导致有益微生物群的减少和致病菌的扩张,
(B)也可以为肠道病原体的扩张提供机会。
(C)此外,蛋白质发酵的增加和碳水化合物代谢的减少也会影响宿主的代谢。
(D)重要的是,铁可以在肠道中诱导活性氧(ROS)的产生,从而导致氧化应激,从而导致肠上皮损伤。
· 反过来,宿主的肠道免疫系统会对炎症、肠道损伤和可能的感染做出反应。
对于缺铁个体的补铁,可以改善肠道微生物的组成,降低致病菌的数量。但是在一些研究中,缺铁性贫血的个体口服补铁常会伴随胃肠道症状和肠道感染等副作用。在非洲的研究中,接受了铁强化剂饼干的儿童,铁补充并未改善机体贫血状况,反而增加了肠道致病菌肠杆菌数量,减少了乳酸菌和双歧杆菌数量,这些现象的发生可能与宿主的肠道高炎症水平密切相关,受到肠道内铁含量和微生物的影响。
当人体存在低肠道病原体负担时,补充铁剂对于肠道优势菌群或肠道炎症没有明显的影响;当人体不存在肠道病原负担的时候,补充铁剂可恢复肠道菌群,显著增加粪便中抗炎短链脂肪酸浓度并且降低肠道炎症,改善肠道微环境。
铁与病原菌
在哺乳动物中,大多数铁在血红素的卟啉结构中被螯合。由于病原菌生长需要铁,有的病原菌如霍乱包含的基因使霍乱弧菌能够从血红素中获取铁。霍乱毒素通过堵塞末端的毛细血管增加管腔血红素的生物利用度,导致宿主铁利用降低。
图 铁和代谢功能之间联系
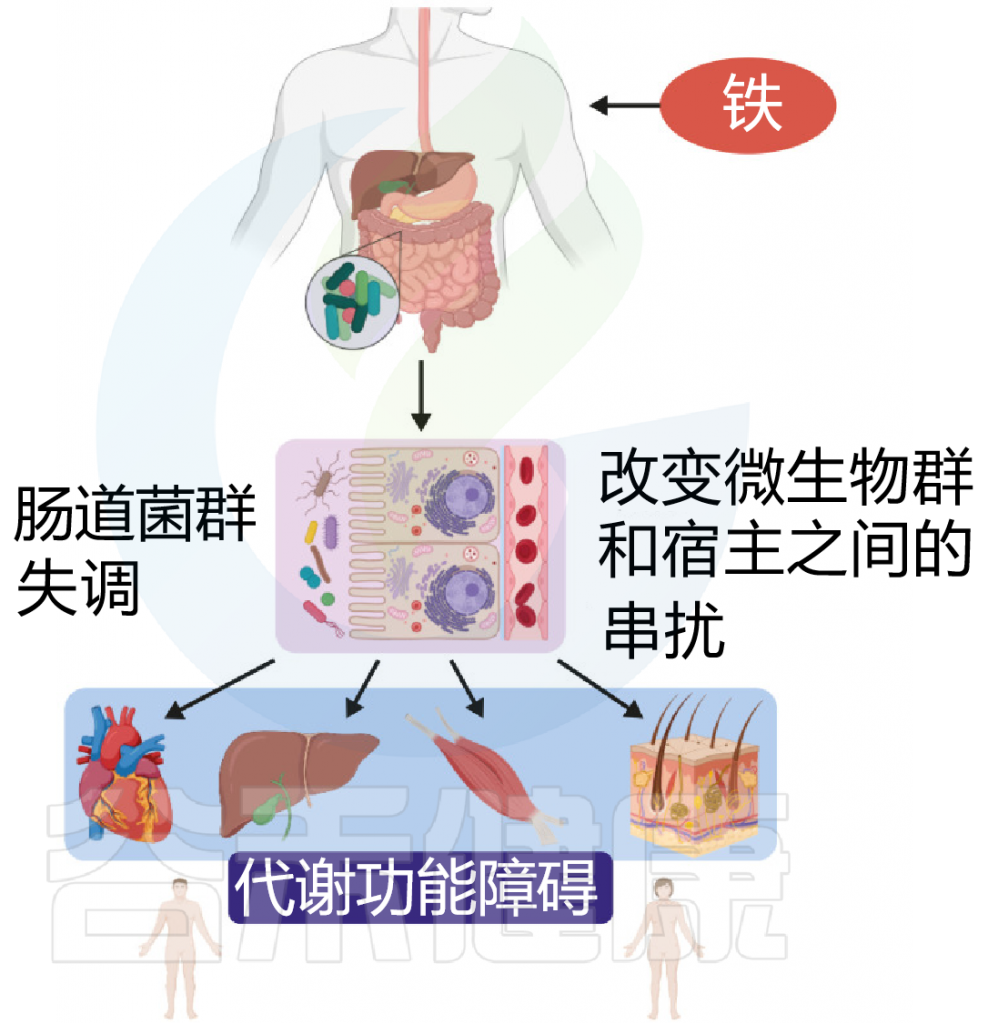

Botta A, et al., J Lipid Atheroscler. 2021
此外,霍乱弧菌产生一种称为弧菌素的铁载体。与肠杆菌素等其他儿茶酚酸酯铁载体不同,这种独特的协同作用有助于逃避宿主免疫系统。霍乱毒素还会增加管腔内的长链脂肪酸和L-乳酸代谢产物,从而导致编码TCA循环含铁硫簇酶的霍乱弧菌基因上调。
因此,霍乱和霍乱毒素的产生在肠道中创造了一个缺铁代谢生态位,通过获得宿主来源的血红素和脂肪酸,选择性地促进霍乱弧菌的生长。
空肠弯曲菌也能捕获宿主铁并在宿主内引起感染。空肠弯曲菌感染是通过食用生的或未煮熟的家禽、海鲜、肉类和未经处理的饮用水发生的,当空肠弯曲菌通过胃时,它必须首先在极端酸性环境中存活。铁的存在增强了它在酸胁迫环境中的生存能力,因此它含有与铁介导的酸保护有关的基因,包括鞭毛生物发生基因、细胞膜生物发生基因、热休克蛋白(GroEL、GroES),这些基因有助于它的生存。
膳食铁可抑制肠道病原体柠檬酸杆菌的生长,并促使选择无症状的柠檬酸杆菌菌株;这些反应与胰岛素抵抗和抑制病原体毒力的葡萄糖水平升高有关。
除了促进胰岛素抵抗外,膳食铁还增加了肠道葡萄糖水平,这是抑制病原体毒力的关键肠道环境变化,并推动了无症状柠檬酸杆菌菌株的选择。然而,相比之下,其他研究表明,铁可用性的降低是有益的,因为它可以减少潜在致病性肠道细菌的生长。
铁对促、健康的 SCFAs 产生的影响
细菌代谢对我们的肠道健康很重要。短链脂肪酸是结肠中的主要代谢物,对肠道健康非常有益,并且是肠细胞和更远距离组织的能量来源。
铁与短链脂肪酸
两项研究首次描述了铁和短链脂肪酸产生之间的联系。
具体来说,体内大鼠管腔缺铁期间丁酸盐和丙酸盐水平较低,并通过补铁恢复。尽管不能排除饮食干预会改变肠道对短链脂肪酸的摄取,但这些结果表明,补铁可以通过增加短链脂肪酸的产生对肠道健康产生有益的影响。
然而,相比之下,高铁条件下似乎没有太大刺激体外短链脂肪酸的产生,而在极低铁条件下丁酸盐和丙酸盐的产生最明显受到损害。这种产量下降伴随着产生短链脂肪酸的菌Roseburia spp./ E. rectale和Clostridium Cluster IV 成员的减少。
体外发酵研究表明,补充铁会略微增加丙酸盐水平,但总短链脂肪酸水平没有显着变化。
与补充铁饮食的大鼠相比,缺铁饮食大鼠的盲肠乙酸盐、丙酸盐和丁酸盐水平降低。他们还表明,与对照组饮食(并且没有首先耗尽铁)的大鼠相比,补充铁饮食的大鼠的丙酸盐和丁酸盐水平更高。因此可以假设,缺铁饮食(与缺铁相结合)可能对肠道健康无益,因为在这些条件下,腔内短链脂肪酸水平会降低。相反,铁补充剂可能会增加促进健康的肠腔短链脂肪酸水平。
值得注意的是,短链脂肪酸可能会影响肠道病原体的毒力。丁酸盐的减少也可能会降低肠内 AMP 导管素的表达,从而削弱宿主的防御能力。
铁与支链氨基酸(BCFA)
与碳水化合物发酵相比,肠道细菌的蛋白质发酵会产生有毒或潜在有毒的代谢物,例如氨、H2S、BCFA(例如异丁酸和异戊酸)、吲哚和酚类化合物。
在体外,低铁条件下 BCFAs 的产生减少,也就是说:铁增加了成人粪便微生物群的 BCFA 的产生以及有毒氨的产生。
值得注意的是,BCFAs 和氨被认为是蛋白质发酵的指标。研究表明铁会刺激蛋白质发酵,这可能会导致更腐败、潜在有毒或致癌的环境。相比之下,在体外发酵研究中发现乳酸(主要来自碳水化合物)水平会随着铁的反应而降低。
虽然在多项体外研究中显示了源自蛋白质发酵的产品毒性的证据,但体内毒性是有限的,最近的一项试验不支持蛋白质发酵在人体肠道毒性中的作用。
另一方面,蛋白质发酵通常与病原菌的生长有关。因此,有必要在体内研究铁对蛋白质发酵和毒性的影响。
重要的是要认识到微生物代谢物的影响不仅限于肠道,因为它们被吸收,并且可能对远处部位和全身宿主代谢产生影响。目前我们还不知道这如何影响人类健康和疾病,但研究暗示铁诱导的肠道微生物活性变化也可能具有全身性影响。
在稳态条件下,肠道内的微生物必须相互竞争,并与宿主竞争可用铁。因此,细菌发展了不同的吸收系统,如铁运输系统和铁载体(铁螯合分子),以便在铁有限的环境中更有利地竞争。
前面我们知道,铁对于细菌的生长繁殖至关重要,但过量的铁也会产生毒性,因此,细菌对铁离子的摄取必须受到精确严格的调控。
细菌已经进化出了铁源的摄取系统。
细菌获取铁的机制
细菌可以通过分泌铁载体摄取Fe3+。铁载体是一种Fe3+特异性的螯合剂,对Fe3+具有超强的络合力。
铁载体能够与宿主体内的转铁蛋白、乳铁蛋白等铁结合蛋白竞争Fe3+,从而形成可溶性的Fe3+-铁载体复合体,这种复合体可以特异性地与细菌细胞外膜上的铁载体受体蛋白(OMRs)相结合,最终被转运至细胞周质中,转运过程通过TonB系统提供能量。
细胞周质中的Fe3+-铁载体复合体与周质结合蛋白(PBPs)相结合,形成Fe3+-铁载体-PBPs复合物。最后Fe3+-铁载体-PBPs复合物由ABC转运蛋白介导,通过内膜进入胞浆。进入细胞后,Fe3+-铁载体-PBPs复合物中的Fe3+被铁还原酶还原为Fe2+,Fe2+与铁载体的亲和力低,从而被释放。
除了分泌高亲和力的铁载体竞争Fe3+外,一些细菌还进化出直接利用转铁蛋白或乳铁蛋白中Fe3+的机制。
大多数革兰氏阳性菌存在直接吸收血红素而获得铁元素的转运系统。
细菌外膜上的血红素受体可以直接与血红素或血红蛋白结合,并将血红素或血红蛋白转运至周质,通过ABC转运蛋白转运至胞质降解或利用,整个过程由TonB系统提供能量。
金黄色葡萄球菌铁依赖性表面决定系统(Isd)可从血红蛋白中获取Fe2+。
除直接的血红素转运系统外,还存在间接的血红素转运系统。如革兰氏阴性菌中存在的Hemophore蛋白介导的血红素转运系统。
除此之外,细菌也可以产生分泌的或位于膜上的铁还原酶,将Fe3+还原成更容易溶解的Fe2+形式,并通过Feo、Yfe、Efe等转运系统来摄取Fe2+。其中Feo转运系统最为重要,大约80%的革兰氏阴性菌都存在Feo转运系统。
调节铁稳态
铁储存蛋白通过以可溶且无毒的形式储存细胞内游离铁来降低其浓度。在铁缺乏时,例如当存在于哺乳动物宿主细胞内或血液中时,铁可以从这些细菌储存中释放出来。
例如,大肠杆菌可以通过FieF输出铁,而且已经描述了一种用于伤寒杆菌的柠檬酸铁外排转运体(IceT);这些铁外流系统的目的是防止细胞内高水平的游离铁造成的压力。此外,血红素输出机制(HrtAB或同源蛋白)已被证明可以缓解某些细菌中血红素的铁胁迫。
最后,双歧杆菌科能够将铁结合到其表面,从而减少周围环境中自由基的形成,并可能在结肠腔中起到铁螯合的作用,以防止病原菌吸收铁。
铁的形态、可用性和结肠腔中的铁之争

Kortman GA, et al., FEMS Microbiol Rev. 2014
胃肠道中的铁形态可能对肠道微生物群获取铁起着重要作用。
低pH值有利于铁和亚铁的溶解性,不一定需要配体(L)来溶解。
当小肠内的pH值升高时,主要是三价铁的溶解度降低,并与食物成分和宿主排泄物形成更多的络合物。
在结肠内,由于微生物群产生乳酸和短链脂肪酸等,pH值略有下降。图中结肠部分的微生物群以橙色表示(有益的)常驻物种和致病物种。
铁调素(Hepcidin)是一种由肝脏产生的肽激素,是全身铁稳态的主要调节剂。铁调素结合并降解铁转运蛋白,从而影响铁被巨噬细胞回收、被肠上皮细胞吸收以及被肝细胞储存的过程。
当体内缺铁时,铁调素浓度较低,从而有利于铁的吸收和从储存部位输送到血浆;
但当体内铁含量充足时,较高的铁调素浓度会降低铁的吸收,并损害铁的释放。
体内“铁稳态”

Anderson GJ, et al., Am J Clin Nutr. 2017
铁在饮食中以血红素和非血红素形式存在。非血红素铁通过DMT1穿过肠上皮细胞的根尖膜,通过FPN1穿过基底外侧膜后进入血液循环。铁与血浆TF结合,分布到全身组织。
菌群会通过代谢物信号传导途径调控系统铁稳态平衡。美国密西根大学研究人员在《Cell-Metabolism》上发表的研究证明了,细菌具有铁依赖性机制,可以抑制宿主铁的运输和储存。肠道菌群产生的代谢物能抑制肠道铁吸收主要转录因子低氧诱导因子 2α (HIF-2α),并增加铁存储蛋白铁蛋白 (Ferritin),从而抑制宿主的铁吸收。
两种菌群代谢物——1,3-二氨基丙烷 (DAP) 和 Reuterin,通过抑制异二聚化作用作为 HIF-2α 抑制剂,可以有效缓解全身铁超负荷。
与铁摄取相关的抗菌治疗
针对细菌生存繁殖对铁稳态的严重依赖,可将病原菌的铁获取系统作为抗菌治疗的靶点,开发针对病原菌铁稳态的化合物治疗细菌感染,同时可基于该系统研发疫苗。
大鼠和家兔服用抗生素后,铁的吸收也减少了。然而,小鼠研究发现,抗生素治疗后,铁的吸收增加了。这些发现表明,抗生素的使用可能改善铁缺乏症患者的铁吸收。
铁是饮食变化、微生物组改变和代谢功能障碍之间串扰的关键节点。
代谢综合征指的是一组异常,包括肥胖、血脂异常、胰岛素抵抗和2型糖尿病,这些疾病共同增加了心血管疾病的风险,包括心力衰竭(HF)和非酒精性脂肪性肝病。
通过血清中非转铁蛋白结合铁的存在、高铁蛋白血症、肝铁超载与胰岛素抵抗的相关性,明确了代谢综合征患者中轻度铁过量的患病率。
铁过量与胰岛素抵抗的结合通常被称为代谢异常铁过量综合征,15%-30%的代谢综合征患者会出现这种情况。因此,目前铁过量与代谢当量的关系已被充分认识,但导致代谢功能障碍的机制尚不完全清楚。
降低代谢疾病中铁的效果

在铁储量较高的MetS患者中,男性对心脏和肝脏疾病的易感性较高。
通过静脉切开或使用螯合剂等降低铁含量的干预措施,在某些情况下可以提高胰岛素敏感性,延缓2型糖尿病(T2DM)和心力衰竭的发病,但并不总是成功的。
在长期病态肥胖后,缺铁是一种常见现象,同样也可导致2型糖尿病和心力衰竭。因此,之前的研究表明铁和葡萄糖稳态或心肌病之间存在双向关系,表明最佳铁水平的平衡至关重要。
可能铁在代谢综合征发病机制及其并发症中的作用仍未得到充分重视,而微生物群的修饰是铁代谢影响的一种重要且相对未被探索的中介物。特别是,肠道内饮食中的铁水平改变了微生物群的组成。预计随后会影响微生物组的代谢组谱功能,包括短链脂肪酸和支链氨基酸。这种改变的后果将是宿主的外周胰岛素抵抗和代谢功能障碍。
炎症性肠病 (IBD) 的特征是胃肠道的慢性炎症。炎症与溃疡性结肠炎 (UC) 和克罗恩病 (CD) 中的肠道溃疡有关。IBD 也可能出现出血和吸收不良,三分之一的患者会出现缺铁性贫血。
一项IBD小鼠模型的研究发现,铁含量的改变显着影响 DSS 在小鼠中诱导的结肠炎的严重程度,铁含量的过多或过少都会加剧结肠炎的严重程度。
DSS治疗的高铁饮食小鼠的体重减轻程度不如低铁饮食小鼠,但粪便钙卫蛋白测定的肠道炎症更严重。这些喂食高铁饮食的小鼠经历了变形菌的增加,同时厚壁菌和拟杆菌的减少。
膳食铁水平与结肠炎症的 DSS 治疗和粪便钙卫蛋白水平之间似乎存在协同作用。
摄入两倍于标准水平铁(400 ppm)的饮食会导致微生物组的关键变化,这意味着观察到的这些变化不仅仅是由炎症的严重程度驱动的,还有管腔游离铁也会导致导致IBD中经常观察到的异源状态发展的复杂因素相互作用。
还需要更多了解的是,管腔铁如何影响IBD。此外,还需要研究管腔铁的增加对肠道微生物群的生理影响,以及这可能如何影响菌群多样性。未来也需要更多人体干预研究,进一步确定不同剂量的治疗性口服铁对人体肠道微生物群的复杂影响,尤其是代谢后果。
研究表明,缺铁和铁过量都与结直肠癌的发病机制有关,这表明必须谨慎平衡最佳铁摄入量。
在 965 名 50-75 岁的人群研究中,发现铁摄入量与结直肠息肉之间存在 U 型关系,铁摄入量高(>27.3 毫克/天)或低量(<11.6 毫克/天)的人更容易患上结直肠息肉,这是结直肠癌的前兆病变。
缺铁
由于铁在维持免疫功能中至关重要,铁的可用性不足可能会通过削弱对肿瘤变化的免疫监测,并潜在地改变肿瘤免疫微环境而增强致癌性。来自临床研究的数据表明,在结直肠癌患者中,缺铁与较差的预后和较低的治疗反应相关。
铁过量
大多数强有力的研究证实,膳食铁和铁储存过量都会增加结直肠癌的风险。
五项前瞻性人类队列研究,包括566607名个体和4734例结肠癌患者的数据,表明高血红素铁摄入量与结肠癌风险增加有关(虽然有一个队列没有发现任何关联)。
在防御方面,长双歧杆菌和嗜酸乳杆菌是肠道保护性共生菌。它们形成了一道保护屏障,防止病原菌定植,并产生丁酸盐,作为一种抗癌剂。双歧杆菌科可通过将铁结合到其表面来影响自由基的形成,并促进结肠上皮的日常更新,而乳酸杆菌菌株可降低胆汁酸的诱变效应。
大多数致病菌都具有增强的铁获取机制,因此往往比保护性细菌更容易获得游离铁。也就是说,铁可以促进致病菌和肠道共生菌之间比例的变化,增加肠道中的特定代谢物和炎症。
研究显示,拟杆菌/普氏杆菌、梭状芽孢杆菌、牛链球菌和粪肠球菌可产生遗传毒性代谢物,如硫化氢和次生胆盐,这可能会促进炎症和致癌。
基于抗生素的肠道致病菌清除降低了结肠癌的发病率,并改变了小鼠的肠道微生物群。这些发现得到了人体研究的支持。
可见,针对肠道微生物群的饮食干预有望治疗结直肠癌,但这些方法仍需要进一步研究。
过量的铁对身体会带来不良影响,因此如果体内铁过量则需要采取相应措施。
多酚-铁:结合牢固,防止铁被吸收
饮食中通常含有单宁和儿茶酚等多酚,它们大量存在于茶和咖啡中。这些化合物可以非常牢固地结合铁,从而防止宿主吸收铁,但也防止细菌吸收铁。
然而,在铁缺乏的环境中,致病菌可以产生和/或占用含铁细胞可能受益于铁多酚提取机制,很可能通过清除铁绑定到多酚。
目前尚不清楚这种机制是否在肠腔中发挥重要作用,但可能与此有关,因为肠环境中可能同时存在多酚和铁载体。
此外,某些细菌,如甘蓝链球菌或卢格敦葡萄球菌,可以降解多酚鞣酸盐,并通过这种方式暂时将铁从这种有效的铁粘合剂中释放出来。
可以通过在用餐后一小时内饮用以下饮料来减少铁的吸收:

植酸盐-铁:结合物通过菌群降解,释放铁
另一种具有强铁结合活性的化合物是植酸盐,在食用谷物和豆类为主的饮食后,其肠道可利用性很高。
与单宁酸类似,某些肠道微生物(如大肠菌和双歧杆菌科)可以降解植酸盐,这可能是一种特殊的释放铁的方式,铁可能被降解生物体或其他细菌物种利用。因此,与植酸盐结合的铁可能是结肠肠道微生物群的相关铁源。
然而,应该注意的是,铁与植酸盐的复合物到达结肠时大多是不溶性的,因此不易被降解。然而,之前在常规大鼠的结肠中发现了只能通过微生物作用产生的植酸盐降解产物,但在无菌大鼠中却没有发现。这些发现表明微生物降解的植酸发生在结肠。
在每餐 2-10mg 植酸盐的极低浓度下,植酸盐会降低铁的吸收。
大豆蛋白(存在于豆腐、组织化植物蛋白和一些加工肉制品中)可以减少铁的吸收,因为它含有植酸盐。
钙
钙对骨骼很重要,但它也可能抑制铁的吸收。为了更好地吸收铁,避免在吃富含铁的食物的同时服用钙补充剂。
牛奶和鸡蛋中的蛋白质
虽然动物肉中的蛋白质会增加铁的吸收,但牛奶和鸡蛋中的蛋白质(卵清蛋白除外)在与低铁食物一起食用时会减少铁的吸收。
锌
过量摄入锌(由于过度使用锌补充剂)也会损害铁的吸收。
考虑到缺铁对人体健康影响重大,因此实施适当的策略来解决这一问题至关重要。
最常见的策略是食物中的铁补充、益生菌、益生元、铁药物补充剂等方法。
富含铁的食物
前面我们知道,膳食铁有两种形式:血红素和非血红素。血红素铁具有较高的生物利用度,膳食因素对其吸收的影响最小,而非血红素铁的吸收要低得多,并受到其他食物类型的强烈影响。
大多数对年轻女性的研究发现铁状态(铁蛋白和铁)与肉类和其他血红素铁的消耗量之间存在正相关关系。
增加富含铁的食物的摄入量,以补充铁储备,确保饮食健康均衡。
其中常见的富含铁元素的食物包括:
红肉、家禽(包括肝脏类)、鱼、豆类、扁豆、豆腐、豆豉、坚果、种子等
非血红素形式的铁含量高的植物性食物(但也可能含有高含量的阻止铁吸收的物质)包括:
● 豆类,包括鹰嘴豆、豆类、豌豆和小扁豆
● 种子,包括芝麻和南瓜子
● 绿叶蔬菜,包括西兰花和羽衣甘蓝
以上是富含铁元素的食物,同时其他富含维生素的食物也能辅助铁的吸收,例如,维生素A,维生素C.
维生素C:促进铁的吸收
如果膳食中含有大量维生素C,那么蔬菜膳食的吸收量可能会增加六倍。维生素C和柠檬酸以剂量依赖的方式促进铁的吸收,部分是通过充当弱螯合剂来帮助溶解小肠中的铁。
一项研究发现,维生素 C 的摄入量与女性的铁含量呈正相关。
在存在抑制铁吸收的物质(包括植酸盐、多酚、钙和蛋白质)的情况下,维生素 C 还有助于铁的吸收。
如果同时服用,维生素 C可将植物性食物中的非血红素铁的吸收提高 2 至 3 倍。因此,为了提高铁的摄入量,可以将富含铁的植物性食物与富含维生素 C 的食物结合起来。
水果或蔬菜中都会包含维生素 C,包括:
● 柑橘类水果
● 奇异果
● 草莓
● 番茄
● 辣椒
● 西兰花
● 卷心菜
● 菠菜

维生素A:克服植酸盐的影响促进铁的吸收
维生素 A直接影响铁转运和红细胞生成。
全谷物和豆类中的植酸盐会降低铁的吸收,但如果加入富含维生素A和β-胡萝卜素的食物可以增加铁的吸收,并可以克服植酸盐的影响。
维生素A(视黄醇)有助于治疗缺铁性贫血,并能改善儿童和孕妇的铁状况。
常见的富含维生素A和β-胡萝卜素的食物:
● 胡萝卜
● 红薯
● 鱼
● 哈密瓜
● 甜椒
● 南瓜
● 葡萄柚
益生菌
大多数益生菌产生乳酸,这可能会降低 pH 值,从而增加铁的溶解度,帮助其吸收。
例如,植物乳杆菌 299v 有助于预防缺铁性贫血。这种益生菌可以改善活跃的高加索欧洲人的膳食非血红素铁吸收。
发酵乳杆菌是人类微生物群中的一种主要益生菌,具有显著的铁还原活性。对羟基苯乳酸是该菌株产生的代谢物,通过DMT1转运体将Fe3+还原为Fe2+来增加肠细胞对铁的吸收。
与益生菌菌株给药相关的铁吸收
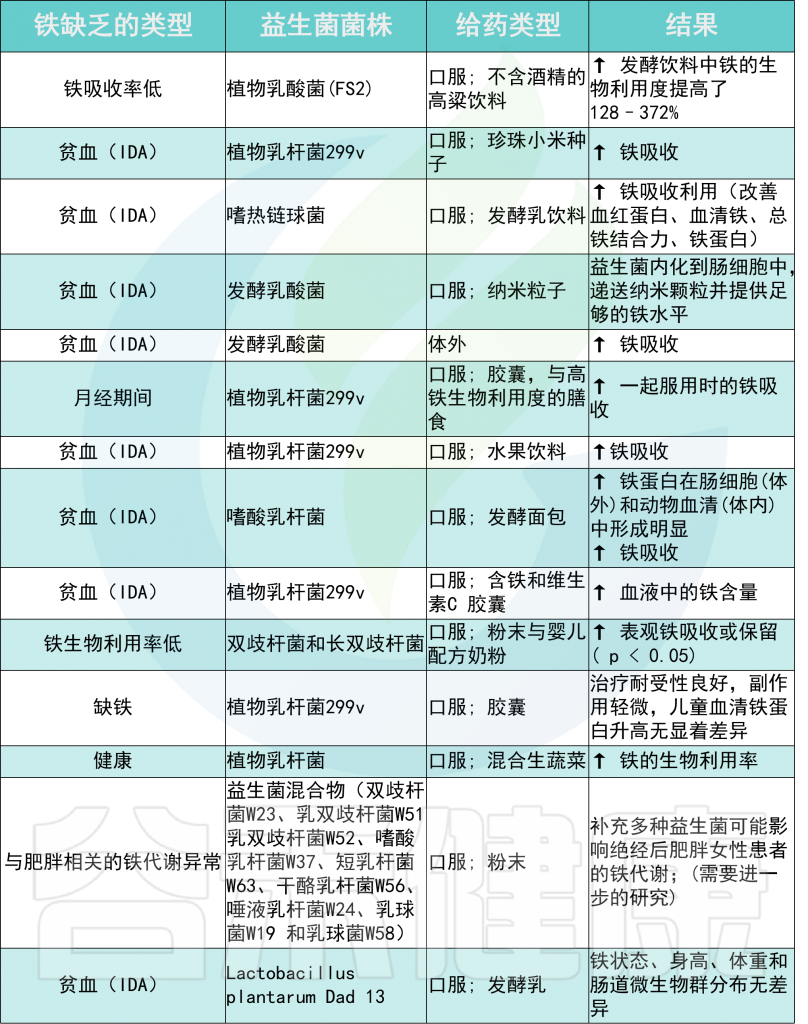

Rusu IG,et al., Nutrients. 2020
益生元
益生元是功能性食品成分,可刺激肠道中有益细菌的生长和定植,最终改善身体健康。肠道微生物群定植在肠道生理学中起着重要作用。
几项研究将益生元和/或合生元的摄入与铁可用性的增加联系起来,主要是通过将 Fe 3+转化为 Fe 2+(由于它们的铁还原活性),并促进肠细胞对铁的吸收。
例如,在肯尼亚儿童中进行的一项补铁试验报告称,在服用益生元期间铁吸收更高半乳糖寡糖 (GOS)底物。
不同类型铁缺乏症的益生元和合生元摄入量及其对机体铁水平的影响
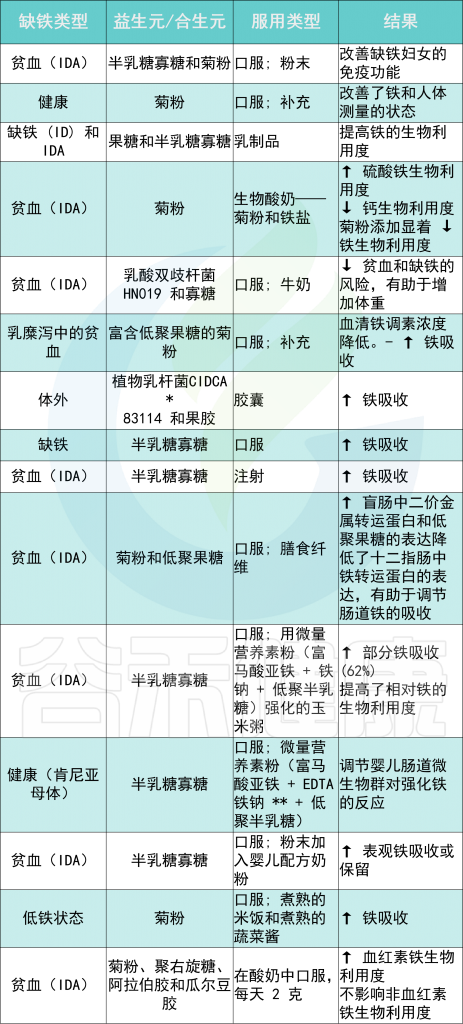

Rusu IG,et al., Nutrients. 2020
* CIDCA——食品冷冻技术研发中心
** EDTA——乙二胺四乙酸
补充剂
不同形式的铁补充剂补充铁以亚铁(+2)和铁(+3)的形式存在。由于铁形态必须在体内转化为亚铁形态以供吸收,因此亚铁形态更具生物利用度。
常用的口服亚铁补充剂包括:
● 柠檬酸亚铁
● 硫酸亚铁
● 葡萄糖酸亚铁
● 铁琥珀酸亚铁
● 氨基酸螯合物(如双甘氨酸铁、天冬氨酸铁)
● 血红素铁
虽然最常研究的铁补充剂是硫酸亚铁,但食品强化和补充剂研究表明,氨基酸螯合形式的铁(如甘氨酸)更好或同样好地被吸收。
例如,在一项针对孕妇的研究中,25mg甘氨酸亚铁能够将铁水平提高到与50mg硫酸亚铁相同的水平。
较新配方的铁补充剂可能比亚铁盐更容易耐受,胃肠道副作用更少,如:
然而,在提高产品螯合率、安全性,降低产品成本等方面有待进一步研究。
铁注射需要医疗监督。当口服铁补充剂不能耐受时,可以注射,这通常适用于患有腹腔疾病和炎症性肠病的患者。在手术或输血后血红蛋白必须迅速增加的情况下,也建议使用。注射铁剂比口服疗法更昂贵,而且不能在怀孕的前三个月用。
建议注射羧麦芽糖铁和异麦芽糖铁,因为它们能够以更大剂量给药,且安全性好。
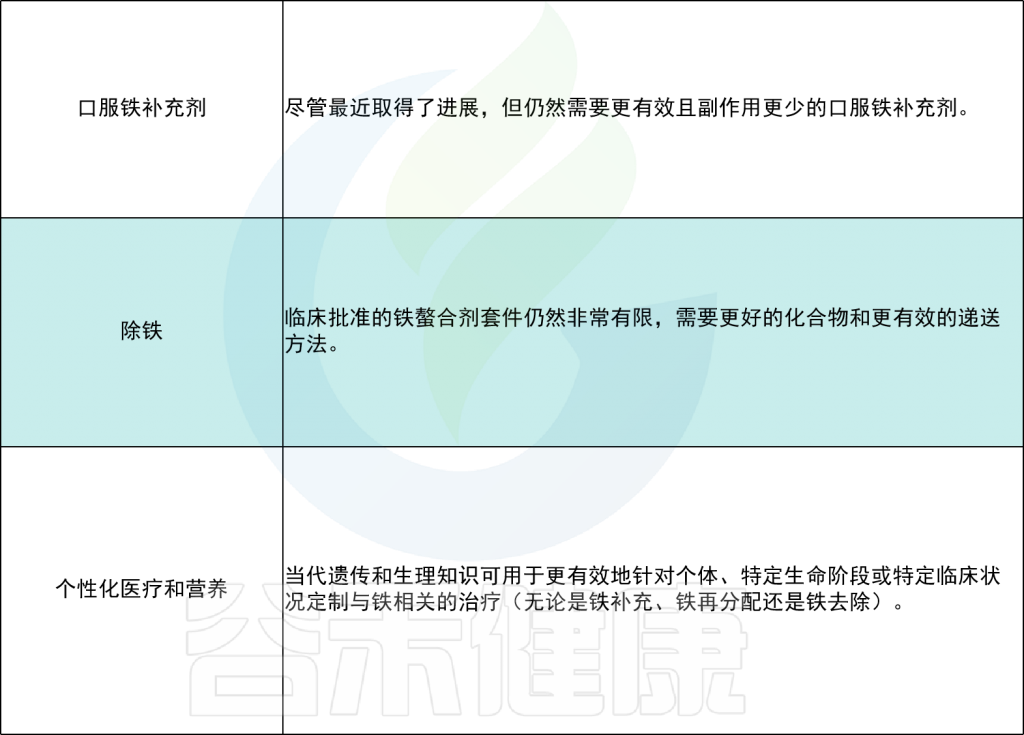

另外,特殊人群对铁的需求量不同:
健身人群补铁
运动会加快铁在机体中的代谢,长期的运动使组织内储存铁的含量明显下降,是红细胞的更新速度加快,运动还导致机体对铁的吸收率降低,这些都增加了健身人群对铁的需要量。
我国对健身人群每日膳食的推荐的摄入量为:男性20毫克/天,女性25毫克/天。
妊娠期补铁
孕妇对铁的需求量比一般人群更高,每天 27 毫克。
妊娠期间,受母体铁状态调节的铁调素血清浓度极低。由于铁调素是肠道铁吸收的负调节剂,低水平表明对铁的需求高。
妊娠早期和中期缺铁与孕产妇发病率增加和不良妊娠结局风险增加有关,包括低出生体重、早产或宫内生长受限。
大多数产前维生素都含有足够的铁来弥补这种增加,但由于对血液产生的需求增加,缺铁性贫血在怀孕期间很常见。因此需要合理补铁。
具体补铁方式可参考上面列出的形式。
铁对于维持宿主肠道菌群稳态和肠道微生物的生长定植有重要作用。一些菌群,尤其是致病菌的生存,必须依靠铁的存在,因此形成了多种摄取铁的机制,并且参与调节宿主的肠道铁吸收。同时,铁与宿主的肠道微生物和微生物代谢产物共同作用,可对肠道乃至整体健康产生影响。
在补铁的同时,需要防止补铁带来的代谢紊乱和炎症损伤,也就是说铁的补充要在允许的条件下适度补充。那么怎么知道是否在合理范围内?目前对铁的监测以血液检测较常见,但血液检测波动较大。
此外,既已发现了铁与肠道菌群相关性,肠道菌群检测也是一个可行方向。谷禾肠道菌群健康检测报告中包含铁的水平,这是基于菌群代谢计算得到的,与血液检测有所不同,肠道菌群检测反映的是一段时间(2周左右)的长期状态。
未来需要更多的研究来证明铁、宿主与肠道菌群的相互作用机制,以及其与肠道炎症疾病等多种慢性疾病发生发展之间的因果关系,为铁补充的个性化策略提供更多支持。
各类人群的铁需求量

►►►
铁补充的副作用及相关禁忌
► 可能出现的副作用
► 禁忌症
铁补充剂不应用于以下人群:
声明:本账号发表的内容用于信息的分享,仅供学习参考使用。在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献:
Yilmaz B, Li H. Gut Microbiota and Iron: The Crucial Actors in Health and Disease. Pharmaceuticals (Basel). 2018;11(4):98. Published 2018 Oct 5. doi:10.3390/ph11040098
Botta A, Barra NG, Lam NH, et al. Iron Reshapes the Gut Microbiome and Host Metabolism. J Lipid Atheroscler. 2021;10(2):160-183. doi:10.12997/jla.2021.10.2.160
Finlaysontrick E C , Fischer J A , Goldfarb D M , et al. The Effects of Iron Supplementation and Fortification on the Gut Microbiota: A Review[J]. Gastrointestinal Disorders, 2020, 2(4):327-340.
Yilmaz B, Li H. Gut Microbiota and Iron: The Crucial Actors in Health and Disease. Pharmaceuticals (Basel). 2018 Oct 5;11(4):98. doi: 10.3390/ph11040098. PMID: 30301142; PMCID: PMC6315993.
Kortman GA, Raffatellu M, Swinkels DW, Tjalsma H. Nutritional iron turned inside out: intestinal stress from a gut microbial perspective. FEMS Microbiol Rev. 2014 Nov;38(6):1202-34. doi: 10.1111/1574-6976.12086. Epub 2014 Sep 29. PMID: 25205464.
Georgieff MK. Iron deficiency in pregnancy. Am J Obstet Gynecol. 2020;223(4):516-524. doi:10.1016/j.ajog.2020.03.006
Rusu IG, Suharoschi R, Vodnar DC, et al. Iron Supplementation Influence on the Gut Microbiota and Probiotic Intake Effect in Iron Deficiency-A Literature-Based Review. Nutrients. 2020;12(7):1993. Published 2020 Jul 4. doi:10.3390/nu12071993
Anderson GJ, Frazer DM. Current understanding of iron homeostasis. Am J Clin Nutr. 2017 Dec;106(Suppl 6):1559S-1566S. doi: 10.3945/ajcn.117.155804. Epub 2017 Oct 25. PMID: 29070551; PMCID: PMC5701707.
LIU Fang-Tong, FAN Hao-Nan, SHEN Li-Xin, LI Bo. Iron acquisition by bacterial and adaptive immune responses[J]. Microbiology China, 2019, 46(12): 3432-3439.
Tolkien Z, Stecher L, Mander AP, Pereira DI, Powell JJ. Ferrous sulfate supplementation causes significant gastrointestinal side-effects in adults: a systematic review and meta-analysis. PLoS One. 2015;10(2):e0117383. Published 2015 Feb 20. doi:10.1371/journal.pone.0117383
GUAN Lingjuan,CAO Congcong,TU Piaohan,et al. Research progress of the effect of iron deficiency on intestinal immune function and new iron supplements[J]. Food and Fermentation Industries,2020,46(19):264 -270
高鹤, 杨浕滢, 应晓玲,等. 铁,宿主和肠道菌群相互作用的研究进展[J]. 现代预防医学, 2020, 47(20):4.