-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
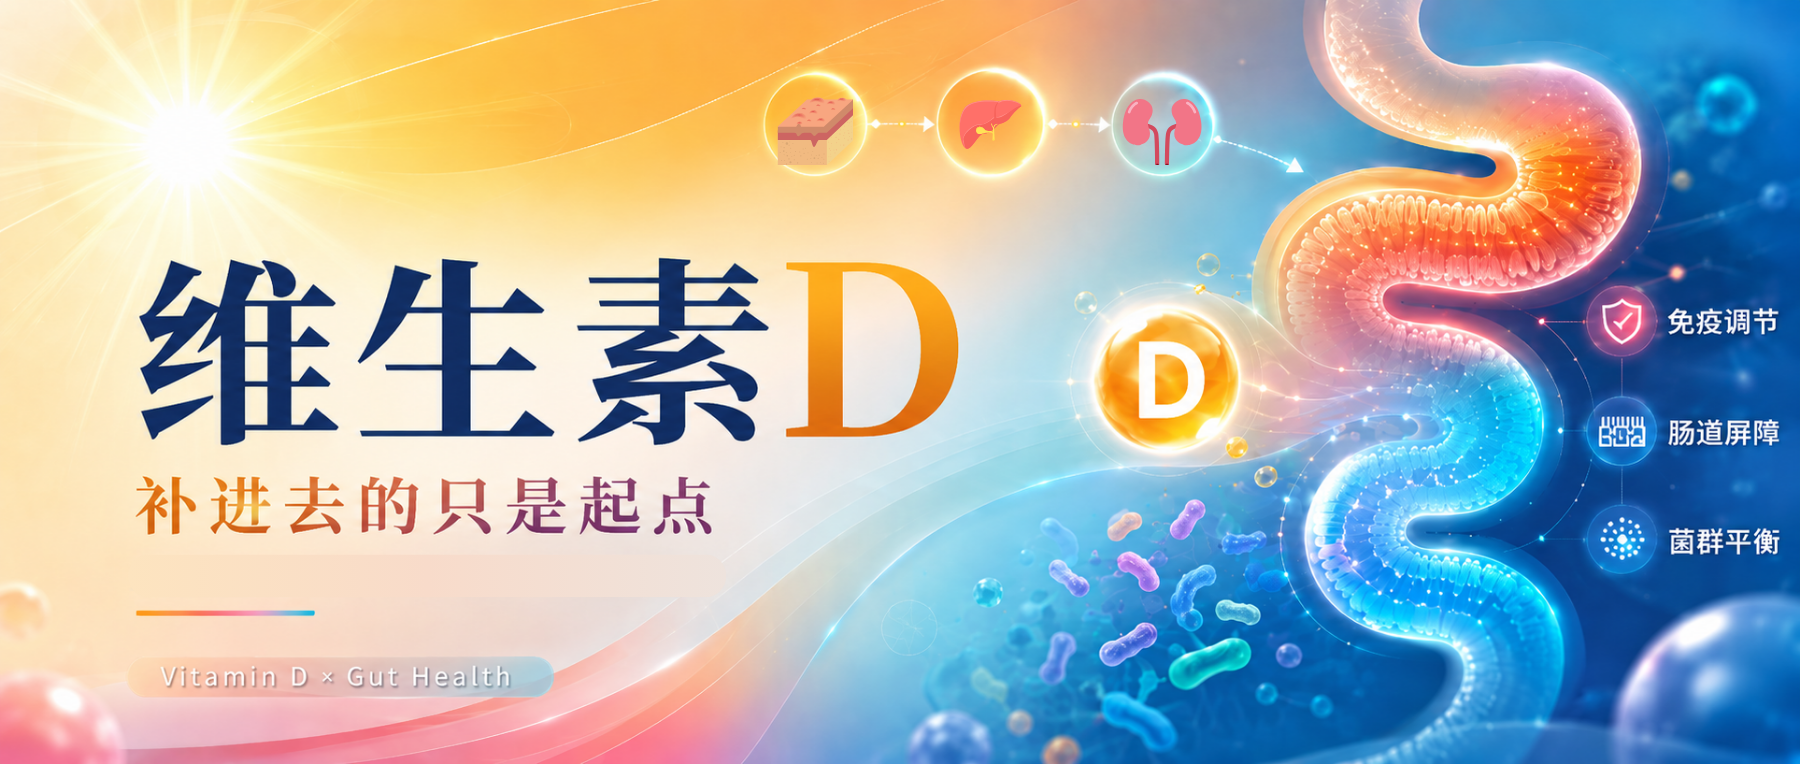
说到维生素D,人们通常先想到补钙、长个子和预防骨质疏松。实际上,它在人体中的作用并不局限于骨骼。在肠道、免疫细胞和神经系统等多种组织中,都能发现维生素D受体。维生素D转化为活性形式后,可能参与肠道屏障维护、免疫反应调节、神经发育以及身体稳态的维持。
不过,这些作用有一个前提:维生素D必须先被身体顺利吸收、运输和转化。
以口服补充剂为例,它需要先经过肠道吸收,再进入血液循环,并在肝脏、肾脏及部分局部组织中完成后续转化。这个过程中的任何一个环节出现问题,都可能影响最终的检测结果和利用效率。
例如,小肠黏膜状态、脂肪消化能力、胆汁酸分泌、慢性炎症以及肠道菌群,都可能影响维生素D的吸收。消化吸收不良、饮食长期受限,或身体处于某些特殊生理状态时,维生素D水平也可能更容易出现波动。
与此同时,维生素D与肠道之间并不是单向关系。肠道状态会影响维生素D的吸收和利用;维生素D也可能通过维生素D受体,参与维持肠道上皮连接、调节黏膜免疫,并影响局部微生物的生存环境。
当维生素D水平长期偏低时,答案未必只是再多补一点。需要判断的是:问题出在摄入不足、肠道吸收、体内转化,还是持续存在的炎症和代谢消耗。
佝偻病、鱼肝油、阳光:维生素D是怎样被发现的?
20世纪初,工业化城市里出现了一种令人困惑的现象。
不少儿童双腿弯曲、骨骼变软,生长也受到影响。医生知道这是一种佝偻病,却说不清它为什么在拥挤、烟雾笼罩的城市中格外常见。
医生逐渐发现两件看起来似乎没有联系的事:
1919年前后,德国医生库尔特·胡尔兹钦斯基(Kurt Huldschinsky)通过紫外线照射改善了佝偻病儿童的骨骼状况。
几年后,Elmer McCollum等人在鱼肝油中确认了一种不同于维生素A的“抗佝偻病因子”。
这种物质被命名为维生素D(即第四种维生素)。
从阳光和食物中获得的维生素D,其实还不能直接“上岗”
我们习惯把维生素D当作一个单独的名称,但它在人体中并不是始终保持同一种形态。
常见的初始形式主要有两种:
维生素D₂ 和 维生素D₃
维生素D3的生物效价通常被认为高于维生素D2。研究表明,在同等剂量下,维生素D3提升血清25-羟基维生素D(25(OH)D)水平的效果优于维生素D2,且维持时间更长。因此,临床上多数维生素D补充剂采用D3形式。
但无论是D₂还是D₃,刚进入人体时都只是原始形式,还要继续转化。
它们首先在肝脏中转化,变成25-羟维生素D[25(OH)D]。
这是血液中较主要、相对稳定的循环形式,也是目前评价维生素D状态最常使用的指标。
随后再主要由肾脏以及部分局部组织进一步活化,进一步转化为具有更强生物活性的1,25-二羟维生素D[1,25(OH)₂D]。
它与维生素D受体VDR结合后,才能参与调节相应的细胞活动。
这也是为什么,“吃进去了多少”与“身体最终利用了多少”,并不总是同一件事。
Q:为什么通常测的是25(OH)D,而不是活性更强的1,25(OH)₂D?
A:25(OH)D在血液中的含量更高、相对稳定,更适合反映总体维生素D状态。
而1,25(OH)₂D受到甲状旁腺激素、钙磷水平和肾功能等因素的严格调节,即便维生素D储备不足,其数值也可能暂时维持,因此通常不用于常规判断维生素D是否缺乏。
晒太阳就可以补充,为什么维生素D不足仍然常见?
维生素D不足,到底有多常见?
我们先来看一组数据。
2023年发表的一项全球汇总分析,纳入了2000—2022年间的308项人群研究,覆盖81个国家,共计7,947,359名参与者。研究发现:
换句话说,即使采用相对严格的低值界限,维生素D明显偏低也不是少数人的情况;若采用50nmol/L这一更宽的界限,涉及的人群范围会进一步扩大。
不同指南对“缺乏”“不足”和“充足”的界定存在差异。
那么问题来了,
既然人体能够通过皮肤合成维生素D,
阳光也从未消失…
为什么维生素D低水平仍然广泛存在?
现代人的生活轨迹:
白天在办公室,通勤在车内,晚上运动在健身房,基本娱乐活动都可以发生在室内。人并不是完全没有接触阳光,而是真正用于皮肤合成维生素D的机会,可能比想象中少。
该研究中提到,皮肤最终能够合成多少维生素D,会受到季节、纬度、户外时间、肤色、年龄、衣着和空气环境等多重因素影响。
食物中的天然维生素D来源又相对有限;
对于存在脂肪吸收障碍、胃肠道疾病或肝肾功能异常的人,吸收和转化过程还可能受到进一步影响。
编辑
Cui et al., Frontiers in Nutrition (2023)
从骨骼出发,但没有停在骨骼
维生素D对骨骼和钙磷代谢的作用,仍然是目前最明确、最基础的科学认识。
改变人们认识的,是维生素D受体在全身多种组织中的发现。
VDR不仅存在于与骨代谢相关的组织,也分布在小肠和大肠上皮细胞,以及单核细胞、巨噬细胞、树突状细胞、T细胞和B细胞等多类免疫细胞中。
编辑
维生素D与VDR结合后,可以参与调节肠道屏障、黏膜防御和免疫反应。
因此,维生素D是维持身体稳态的众多参与者之一。疾病可能影响维生素D状态,维生素D不足也可能让某些调节过程更难保持稳定;两者之间往往是复杂的双向关系。
也正因为如此,我们看待维生素D时,不能只停留在“有没有吃进去”。还要继续看:
它能否被顺利吸收和转化?
细胞能否接收到它传递的信号?
肠道屏障、免疫系统和菌群,又在其中扮演了什么角色?
下一章,我们就从维生素D进入肠道之后开始。
维生素D进入人体,主要有两条路径。
此后,它们都会进入循环,并经过后续转化,才能发挥相应作用。
前一章已经提到,活性维生素D需要通过VDR向细胞传递信号。
维生素D与肠道之间,并不是一条单向通路,而是一组彼此连接的过程。
对口服维生素D来说,肠道是一道吸收关
维生素D是一种脂溶性维生素。
从食物或补充剂中摄入后,它需要在消化过程中与脂类一起被处理,并在胆汁酸等因素的帮助下,形成便于肠道吸收的结构。
研究显示,膳食和补充剂来源的维生素D主要在近端小肠被吸收。
如果小肠黏膜受到明显损伤,脂肪消化吸收受到影响,或者胆汁分泌和流动存在障碍,维生素D的吸收也可能随之受限。
胆汁酸不仅参与脂肪乳化,也帮助脂溶性维生素在肠道中被吸收;而肠道菌群又会参与胆汁酸的后续转化。
也就是说,小肠、胆汁酸和微生物共同构成了口服维生素D所面对的消化环境。
不过,吸收只是维生素D与肠道关系的第一层。
维生素D如何帮助守住肠道屏障?
肠道每天接触大量食物成分、微生物和外来分子。
这项工作依靠的不是一堵静止的墙,而是一套持续更新的屏障系统。
这道边界由黏液层、肠上皮细胞、细胞间连接结构、抗菌分子和局部免疫细胞共同维护。
编辑
第一层,是上皮细胞之间的连接
肠上皮细胞排列成连续的物理边界,细胞之间由紧密连接和黏附连接控制物质通行。
维生素D相关信号与ZO-1、Occludin、Claudin、E-cadherin等连接蛋白的表达和组织有关。
动物和细胞研究发现,VDR信号受损时,部分连接结构会出现紊乱,肠道通透性和炎症易感性也可能增加。
第二层,是上皮的更新与修复
肠上皮是人体更新较快的组织之一。
老化或受损的细胞不断脱落,新的细胞从肠隐窝产生并向上迁移。如果损伤速度超过修复能力,即使连接蛋白仍然存在,屏障也可能出现缺口。
现有机制研究提示,维生素D-VDR信号与上皮细胞存活、损伤后的修复以及自噬过程有关。
VDR缺失的动物模型中,可观察到上皮细胞凋亡增加、隐窝修复能力下降以及炎症加重。
注:这里所说的自噬,可以简单理解为细胞清理受损结构、维持内部秩序的一套机制。它也是上皮细胞和潘氏细胞应对微生物刺激的重要方式。
第三层,是让微生物与肠壁保持合适距离
稳定的肠道屏障,不只是没有裂缝。
覆盖在上皮表面的黏液层、潘氏细胞产生的防御分子,以及Cathelicidin、Defensin、溶菌酶等抗菌物质,共同帮助微生物与肠壁保持适当距离。
维生素D相关信号参与这些抗菌肽的表达,也与潘氏细胞功能及自噬有关。其作用并不是把菌群全部清除,而是帮助宿主维持空间秩序:允许共生菌存在,同时限制潜在致病微生物过度靠近或侵入上皮。
《Gastroenterology》 的一项研究构建了潘氏细胞特异性VDR敲除小鼠。VDR缺失后,潘氏细胞中的自噬相关蛋白 ATG16L1 和溶菌酶减少,分离出的潘氏细胞抑制病原菌生长的能力也随之减弱。
在沙门氏菌感染模型中,这类小鼠出现了更明显的肠道炎症,提示VDR可能通过维持潘氏细胞的自噬与抗菌分泌功能,帮助限制肠道病原菌入侵。
注:这项证据来自动物模型,说明的是VDR信号与宿主抗菌防御之间的机制联系,不能直接理解为口服维生素D能够在人群中清除沙门氏菌或某一种特定细菌。
维生素D调节免疫,不是简单地增强免疫力
肠道不仅负责吸收营养,也是免疫细胞高度集中的场所。
这里每天都要判断:
因此,肠道免疫并不是反应越强越好。
反应不足,可能难以控制入侵者;反应过度,则可能持续释放炎症信号,损伤上皮和周围组织。
维生素D参与的,更接近免疫反应方向和强度的调节。
一方面,它帮助先天免疫完成早期防御
当微生物越过黏液层和上皮屏障后,巨噬细胞会识别并吞噬外来微生物,同时释放炎症信号,招募更多免疫细胞参与清除。
活性维生素D可以通过巨噬细胞上的VDR参与这一过程,包括促进部分抗菌肽表达,并调节细胞因子的释放。病原刺激得到控制后,维生素D相关信号还可能帮助巨噬细胞由偏炎症的状态逐渐转向组织修复,增加IL-10、TGF-β等调节和修复相关信号,同时限制TNF-α、NF-κB等炎症通路持续活跃。
★ 免疫细胞也能在局部“激活”维生素D
2026年国际循证共识指出,肠道巨噬细胞和树突状细胞可表达维生素D活化酶CYP27B1,将进入局部环境的25(OH)D转化为活性形式。
这提示维生素D的一部分免疫调节作用可通过免疫细胞的局部活化实现;在微生物刺激下,这种局部转化可能增强,从而支持局部抗菌和免疫调节功能。
编辑
另一方面,它帮助适应性免疫避免过度反应
树突状细胞承担着呈递信息的工作:它们识别外来成分,再把相关信息传递给T细胞,决定是否启动更有针对性的免疫反应。
机制研究显示,活性维生素D可能抑制树突状细胞过度成熟,使其更倾向于维持耐受性状态;同时减少促炎因子IL-12的产生,增加IL-10等调节性信号。这样可以降低树突状细胞持续推动炎症性T细胞反应的可能。
编辑
在T细胞层面,维生素D相关信号可抑制Th1和Th17细胞的过度活化,减少IL-2、IFN-γ、IL-17和TNF-α等炎症介质,同时促进调节性T细胞,也就是Treg细胞的分化和功能。
Treg细胞可以理解为免疫系统中的“制动机制”。它们帮助身体对正常菌群、食物成分和自身组织保持耐受,减少不必要的持续攻击。
B细胞也可能受到影响。细胞和动物研究提示,维生素D可能抑制部分B细胞增殖、浆细胞分化和免疫球蛋白产生。
但这类作用具有明显的疾病和免疫环境差异,不能简单概括成“维生素D抑制B细胞”。
免疫、屏障和菌群会彼此影响
肠道免疫不是独立工作的。
当屏障受损时,更多细菌成分和抗原可能进入黏膜深层,促使巨噬细胞、树突状细胞和T细胞持续活化;炎症因子增加后,又可能破坏上皮连接、影响黏液层和细胞修复。
与此同时,免疫环境还会改变不同微生物的竞争条件。一些更适应炎症环境的微生物可能获得优势,而部分依赖稳定、低炎症环境的共生菌则可能受到限制。
所以,维生素D的免疫作用更适合被理解为:
在需要时支持抗菌防御,在刺激减弱后帮助炎症逐渐回落,并维持身体对食物、共生菌和自身组织的适度耐受。
维生素D会改变菌群吗?
2025年发表在《Nutrition Review》的一项系统综述,对14项随机对照试验(RCTs)进行了全面分析,共纳入1,458名不同健康状况和补充方案的参与者。
受试者包括健康人,也包括肥胖、结直肠癌、囊性纤维化、HIV感染、艰难梭菌感染、COVID-19和脂肪性肝病患者。
总体上,12项研究报告维生素D补充后肠道菌群发生显著变化,2项未发现明显变化。
主要变化包括:
部分研究发现菌群多样性提高
一些试验显示α多样性或β多样性增加,提示菌群丰富度、均匀度或整体结构发生改变。
注:也有研究未发现多样性变化,因此结果不完全一致。
有益菌可能增加
补充维生素D后,部分研究观察到以下菌群丰度上升:
这些菌通常与抗炎、维护肠黏膜屏障或代谢健康相关。
同时Bacteroidetes/Firmicutes比值也出现升高。该比值被认为是肠道健康的重要生物标志物。
部分潜在不利菌减少
某些试验发现,Proteobacteria、Streptococcus、Dialister 等菌群减少。
但这一结果并未在所有研究中重复出现。
补充维生素D对肠道菌群的影响
doi.org/10.1093/nutrit/nuaf120
BMI 体重指数;IL 白细胞介素;MAFLD 代谢功能障碍相关脂肪性肝病;NAFLD 非酒精性脂肪性肝病;NR 未注册;RCT 随机对照试验;TMAO 三甲胺 N-氧化物。
符号:↔ 无变化;↑ 增加;↓ 减少
菌群也可能反过来影响维生素D
维生素D可能改变菌群生活的环境,菌群也会不断产生代谢物,反过来影响肠上皮、免疫系统以及维生素D相关信号。
目前研究较多的连接点,主要包括短链脂肪酸和胆汁酸。
短链脂肪酸可能影响VDR所处的信号环境
肠道细菌能够发酵人体难以直接消化的膳食成分,产生乙酸、丙酸和丁酸等短链脂肪酸。
丁酸可以为结肠上皮细胞提供能量,同时参与黏液产生、紧密连接、免疫耐受和炎症调节。部分实验研究还发现,丁酸可能增加肠上皮中的VDR及自噬相关蛋白ATG16L1表达,从而影响上皮细胞应对微生物刺激的能力。
这意味着,维生素D信号并不只取决于血液里有多少维生素D,也可能受到局部代谢环境影响。
菌群代谢物如何影响VDR?
在实验性结肠炎模型中,引入菌群发酵产物丁酸后,研究者观察到肠上皮VDR和ATG16L1表达上升,并伴随炎症减轻。
另有细胞和动物研究发现,使用 Lactobacillus rhamnosus GG 或 Lactobacillus plantarum 后,人结肠上皮细胞及单菌定植猪模型中的VDR表达有所增加。
这些结果提示,特定菌株及其代谢产物可能影响VDR相关功能,但证据主要来自细胞和动物研究。
例:肠球菌失调介导维生素D缺乏相关的记忆障碍
还有研究提出一种更上游的可能。
2025年的一项队列研究发现,血清维生素D水平较低的人群,短期和延迟记忆表现相对较差,同时肠道中肠球菌属(Enterococcus)丰度升高。
研究者进一步观察到,肠球菌失衡与部分产短链脂肪酸菌减少及相关代谢功能变化有关,因此推测肠球菌可能是连接维生素D缺乏与记忆障碍的中间因素。
编辑
doi.org/10.1016/j.heliyon.2025.e41969
也就是说,维生素D不足所伴随的健康影响,可能不完全由血液中的维生素D浓度直接造成,也可能经过“菌群失衡—短链脂肪酸代谢改变—肠屏障和免疫炎症异常—脑功能受影响”这一路径传递。
菌群通过胆汁酸,把消化吸收与信号调节连接起来
胆汁酸首先帮助脂肪和脂溶性维生素在小肠中被消化吸收,但它的作用并不止于乳化脂肪。
肝脏合成的初级胆汁酸进入肠道后,会被部分肠道细菌进一步改造。具有胆盐水解酶,也就是BSH活性的微生物,可以对结合型胆汁酸进行脱结合;另一部分细菌再通过7α-脱羟基等反应,参与生成脱氧胆酸、石胆酸等次级胆汁酸。
这些胆汁酸既会影响微生物生存,也能作为信号分子,与FXR、TGR5和VDR等受体通路发生联系。
哪些细菌参与胆汁酸转化?
BSH活性分布在多个菌群中,相关文献提到的菌属包括乳杆菌属、双歧杆菌属、拟杆菌属、Clostridium、Enterococcus、Listeria;
参与7α-脱羟基反应的能力则主要见于部分 Clostridium 及其他厚壁菌门成员。它们可以参与初级胆汁酸向脱氧胆酸和石胆酸等次级胆汁酸转化。
石胆酸及其部分衍生物可以与VDR发生相互作用,这为菌群与维生素D信号之间提供了一条可能的分子连接。
某些菌株可能与血清维生素D变化有关
部分研究还观察到,特定益生菌干预后,血清25(OH)D发生变化。
一项人群干预研究报告,补充具有BSH活性的 Lactobacillus reuteri NCIMB 30242 后,参与者循环25(OH)D水平升高。
动物研究还提供了另一条较早期的线索:菌群可能通过FGF23影响活性维生素D代谢。
无菌小鼠中曾观察到,FGF23升高和1,25(OH)₂D降低;重新引入共生菌后,这一变化可以部分逆转。由于FGF23会参与调节CYP27B1和CYP24A1等维生素D代谢环节,这提示菌群可能通过宿主内分泌通路间接影响活性维生素D水平。
注:这仍是动物层面的机制线索,距离根据人类菌群结果预测维生素D转化能力还有距离。
理解了这套双向联系,接下来要看的,在哪些身体状态下,这种联系更容易变得重要?
炎症性肠病
克罗恩病和溃疡性结肠炎统称为炎症性肠病,也就是IBD。
IBD和普通肠道发炎不一样。普通感染控制以后,炎症通常会逐渐退去;而IBD中的免疫系统可能长期处于过度活跃状态,反复攻击肠道组织。
有的人长期腹泻、食欲下降,能吃的食物越来越少;有的人因为担心症状反复,主动减少乳制品、鱼类或含脂肪的食物,吃得越来越安全,营养来源却也越来越单一。再加上户外活动减少,皮肤合成维生素D的机会也会下降。
这些情况叠加在一起,都可能让维生素D的来源和吸收受到影响。
编辑
而问题的另一面是:维生素D参与维持肠道屏障和免疫稳定。它与受体VDR结合后,可以影响肠上皮细胞连接、组织修复和免疫反应。
简单来说,维生素D不能直接关闭炎症,却可能帮助肠道把屏障守得更稳,让免疫反应不过度持续。
2026年一项前瞻性临床干预研究,纳入48名维生素D水平较低的IBD患者。
编辑
经过12周维生素D干预,每周50,000 IU,参与者的血清25(OH)D平均升高约20 ng/mL,粪便钙卫蛋白平均下降722 μg/g,提示肠道局部炎症减轻,疾病活动评分和生活质量也有所改善。
编辑
这项研究的重要发现,是维生素D可能帮助肠道免疫系统从“过度警戒”转向更具耐受性的状态。补充后,被IgA抗体结合的肠道菌群增加,而被IgG抗体结合的菌群减少。
可以简单理解为:IgA更多参与肠黏膜表面对共生菌的日常管理,帮助免疫系统与菌群保持相对稳定的关系;而较多的IgG结合,有时意味着这些细菌引起了更强的全身性免疫识别。
进一步的多组学分析还发现,维生素D干预后,部分调节性B细胞和调节性T细胞增加,并出现了与免疫耐受。
对于已经确诊IBD的人,如果同时存在长期腹泻、体重下降、饮食限制、小肠受累、肠段切除,或者规律补充后25(OH)D仍然偏低,可以结合肠道菌群检测,进一步观察菌群结构、短链脂肪酸代谢和肠道屏障状态,为后续的营养干预和肠道管理提供参考。
肠易激综合征
IBS并非单一“肠道问题”
与IBD不同,肠易激综合征,也就是IBS,通常不能用明确的结构性损伤来解释全部症状。
腹痛、腹胀、腹泻或便秘的背后,可能涉及肠道运动、内脏敏感性、屏障通透性、低度免疫激活、菌群代谢以及肠-脑轴等多个环节。不同患者的主要驱动因素并不相同。
维生素D结合益生菌干预改善
2025年一项双盲随机安慰剂对照试验纳入31名进入意向性分析的非便秘型IBS患者。干预组连续12周使用包含8个菌株的复合益生菌,并联合每日2000 IU维生素D₃。
干预后,血清zonulin逐步下降,排便频率和粪便性状有所改善;菌群中 Bifidobacterium animalis subsp. lactis 和 Streptococcus thermophilus 增加,Lachnospira减少,同时观察到放线菌门增加、变形菌门减少,以及粪便乳酸和乙酸升高。
但两组的IBS总体症状严重度评分并无显著差异,而且干预同时包含多菌株益生菌和维生素D,无法判断哪些变化由维生素D单独造成。
维生素D可通过VDR参与肠道屏障和免疫调节,也可能影响5-羟色胺相关通路,从而与肠道运动、疼痛敏感和情绪状态发生联系。
部分研究发现,补充维生素D后,腹痛、腹胀、排便异常或生活质量有所改善,但结果并不一致,患者原有的维生素D水平可能影响疗效。
也有病例对照研究没有发现IBS女性与健康女性的25(OH)D存在显著差异,25(OH)D与菌群多样性等指标也没有明显相关性。
哪些情况下,需要结合维生素D和菌群一起看?
因此,对症状反复、饮食限制明显或补充效果不理想的人,可以将血清25(OH)D与菌群报告中的肠道屏障、炎症、产气、短链脂肪酸和肠-脑轴相关指标结合评估。
例如,以腹泻、腹胀为主,同时提示肠道屏障受损、炎症或LPS水平升高、肠道产气升高、变形菌门增加,说明屏障和免疫调节可能是更需要关注的环节,单纯补充维生素D可能并不充分,还需要同时调整饮食和菌群环境。
免疫系统疾病
前一章提到,维生素D参与树突状细胞、Th17细胞和调节性T细胞等免疫通路;肠道菌群及其代谢物短链脂肪酸,也会持续参与免疫系统的训练。
★ 甲状腺:关注抗体、屏障和菌群功能
自身免疫性甲状腺疾病患者中,较低的25(OH)D较为常见。维生素D与VDR结合后,可限制Th17等促炎反应,并支持Treg和免疫耐受。
编辑
一项汇总26项新诊断自身免疫性甲状腺病病例对照研究的分析发现,桥本甲状腺炎人群的Th17水平整体较高,而Treg、FoxP3表达整体较低,支持Th17/Treg失衡可能参与疾病中的免疫异常。
一些研究还报告,较低的 Prevotella 与Th17/Treg稳态异常有关;其他维生素D干预研究则观察到 Akkermansia 和 Bifidobacterium 等菌群变化。但这些结果来自不同人群和不同研究,尚未形成稳定、可重复的“桥本菌群图谱”。 部分临床研究发现补充维生素D后甲状腺抗体下降。
编辑
DOI:10.3389/fendo.2026.1785878
对25(OH)D偏低的患者,纠正不足有助于维护骨骼、肌肉和正常免疫功能。
但如果维生素D水平已经改善,而抗体、甲状腺功能或症状仍未达到预期,不宜只继续增加剂量,还应结合碘、铁、硒、药物使用和疾病阶段进行判断。
硒是脱碘酶(T4转T3)的核心成分,铁是甲状腺过氧化物酶(TPO)的必需辅酶。缺铁或缺硒,即使D水平再高,甲状腺素也无法顺利转化和利用。
若维生素D水平难以上升,或同时存在消化道症状如腹胀、腹泻、便秘等,左甲状腺素吸收不稳定,进一步考虑肠道屏障、消化吸收和菌群环境。
★ 类风湿关节炎:肠道变化可能与全身炎症相连
一项荟萃分析报告称,维生素D摄入量与类风湿关节炎发病率呈负相关。
几项研究表明,较低的血清维生素D水平与较高的类风湿关节炎活动相关。
两项荟萃分析报告称,类风湿关节炎患者的维生素D浓度低于健康对照组,血清25(OH)D与疾病活动呈负相关,特别是DAS28,其中一项分析还包括CRP。
一些针对RA和维生素D缺乏患者的补充研究报告称,治疗12周或3个月后DAS28有所改善,而一项针对早期RA的安慰剂对照试验发现,整体健康状况有所改善,但对DAS28、疼痛或CRP没有显著影响。
类风湿关节炎患者常见菌群多样性下降。早期或未经治疗的患者中,普雷沃氏菌,尤其是Prevotella copri,Collinsella增多较受关注;粪杆菌属等产丁酸菌则可能减少。前两者与肠道通透性、Th17反应和炎症负担有关,产丁酸菌减少则可能削弱屏障和免疫调节。
注:Prevotella 包含40多种不同种,作用不同,例如 P. histicola 在小鼠中反而显示出降低肠通透性、减轻关节炎的潜力。
编辑
doi.org/10.3390/nu18091325
总的来说,目前的证据表明维生素D状态与类风湿关节炎活动之间可能存在负相关。
然而,因果关系仍不确定。不能排除反向因果关系,因为疾病活动度更高的患者可能行动能力降低,阳光照射减少,从而内源性维生素D合成减少。尽管干预研究相对较少且规模通常较小,但维生素D补充似乎对类风湿关节炎有益。
类风湿关节炎患者而言,尤其在伴有腹胀、排便异常、饮食限制或维生素D补充效果不理想时,可结合DAS28、CRP、ESR,关注菌群多样性、Prevotella、Collinsella和产丁酸菌。这种联合评估更容易发现营养、屏障和免疫环境中可能同时存在的问题。
★ 过敏性鼻炎:维生素D可能影响过敏性炎症
过敏性鼻炎常表现为反复打喷嚏、鼻痒、流涕、鼻塞,部分患者还会伴随睡眠质量下降、注意力不集中、头痛等。其本质不仅是鼻黏膜接触过敏原后的局部反应,也涉及免疫系统对外界物质的耐受和炎症调节。
编辑
维生素D与VDR结合后,可影响树突状细胞和T细胞的反应方式,促进Treg分化,抑制IL-6、TNF-α和IL-17等促炎信号,同时增加IL-10等抗炎因子。因此,当维生素D水平不足时,免疫系统可能更容易维持在过度敏感和持续炎症的状态。
对于鼻炎长期反复、常规治疗效果不稳定、户外活动较少,或者同时存在其他过敏性疾病的人,可以配合检测维生素D水平,判断是否存在不足。若偏低,将维生素D作为整体治疗中的辅助环节,可能有助于改善免疫调节环境。
补充效果会受到年龄、性别、基础用药和干预时间等因素影响。研究中的剂量方案不一定适合自行照搬。
糖尿病、慢性肾病、脂肪肝等代谢异常
糖尿病、心血管疾病、脂肪肝等看似发生在不同器官,却常共享一组基础问题:内脏脂肪增加、胰岛素敏感性下降、低度炎症以及肠道代谢环境改变。
维生素D可通过VDR参与胰岛β细胞功能、胰岛素分泌和炎症调节;肠道屏障受损后,LPS等细菌成分进入循环,也可能进一步影响血糖和脂质代谢。有研究认为,维生素D不足可能与胰岛素分泌下降、敏感性降低及菌群功能异常同时存在。
较低的维生素D水平,经常与高血压、冠心病、心力衰竭和心律失常等风险同时出现,可能涉及内皮功能、炎症和心肌代谢。维生素D更适合作为整体代谢状态中的一个评估指标。
★ 糖尿病:血糖、胰岛素抵抗与β细胞功能
维生素D受体存在于胰岛β细胞和多种免疫细胞中,可能通过影响胰岛素分泌、胰岛素敏感性、炎症反应及免疫调节参与糖尿病的发生与进展。
编辑
糖尿病前期人群:
现有随机对照研究提示,补充维生素D可能在一定程度上,延缓向2型糖尿病进展。
一项整合3项随机临床试验的个体参与者数据分析发现,与安慰剂相比,维生素D使新发糖尿病的相对风险下降约15%,3年绝对风险下降3.3%;同时,恢复至正常血糖调节状态的可能性提高约30%。
研究还发现,随访期间平均25(OH)D达到较高水平的人群,糖尿病风险下降更明显。
已经确诊2型糖尿病的人群:
一项纳入39项随机对照试验、共2982名受试者的Meta分析显示,维生素D补充后空腹血糖、糖化血红蛋白、空腹胰岛素及HOMA-IR均有小幅改善,其中糖化血红蛋白平均下降约0.30个百分点。改善在原本存在维生素D缺乏、超重、基线HbA1c较高的人群中相对更明显。
维生素D更适合作为糖尿病综合管理中的缺乏纠正和辅助因素,而不是替代降糖药、胰岛素、饮食控制和运动。
对于糖尿病前期、肥胖、胰岛素抵抗、血糖控制不佳,或长期缺少日晒的人,可以结合血清25(OH)D、空腹血糖、HbA1c、空腹胰岛素及HOMA-IR进行评估,判断是否存在维生素D不足与糖代谢异常叠加的情况。
1型糖尿病患者还需要关注骨量下降和骨质疏松风险,即使维生素D不确定能改善血糖或阻止β细胞功能衰退,也应维持适宜的维生素D储备。
★ 慢性肾病:活化能力下降,关注VD-PTH-钙磷代谢轴
肾脏是维生素D活化的核心器官。经肝脏生成的25(OH)D需要进入肾近端小管,在1α-羟化酶作用下转化为具有生物活性的1,25(OH)₂D,也就是骨化三醇,从而调节钙磷吸收、骨代谢和甲状旁腺激素分泌。
随着慢性肾病进展,肾单位和近端小管功能减少,1α-羟化酶活性下降;同时FGF23升高、磷潴留以及肾小管对25(OH)D摄取减少,都会进一步限制骨化三醇生成。因此,慢性肾病患者不仅容易出现血液中25(OH)D不足,也可能存在有原料但活化不足的情况。
有研究指出,超过80%的慢性肾病患者存在维生素D缺乏,并且缺乏程度通常随肾功能下降而加重。
活性维生素D下降后,肠道对钙的吸收减少,机体会通过升高甲状旁腺激素来维持血钙,长期可能形成继发性甲状旁腺功能亢进,导致骨转换异常、骨痛、骨质疏松和骨折风险增加。
这一系列钙、磷、PTH、FGF23及骨代谢异常,被统称为慢性肾病矿物质和骨异常,即CKD-MBD。
编辑
维生素D还可能通过维生素D受体参与肾脏炎症和纤维化调节。维生素D不足时,对肾素-血管紧张素-醛固酮系统的抑制减弱,可能增加血压、炎症和纤维化信号;同时NF-κB等炎症通路更容易活化。
因此,低维生素D既可能是肾功能减退、蛋白尿、饮食限制和户外活动减少的结果,也可能与肾脏及心血管风险相互叠加。
研究显示,营养性维生素D对慢性肾病早中期患者的PTH控制有一定帮助,但在透析或慢性肾病 5期患者中的效果并不一致。
2025年欧洲共识建议,对慢性肾病、透析及肾移植后人群监测并纠正维生素D缺乏,可将25(OH)D维持在75 nmol/L以上,即30 ng/mL以上;同时应避免单次或间断使用≥100,000 IU的超大剂量,也应避免25(OH)D长期超过150~200 nmol/L,即60~80 ng/mL,以降低高钙血症等毒性风险。
骨化三醇等活性维生素D制剂通常不等同于普通维生素D补充剂,更适合保留给晚期慢性肾病并伴严重、持续进展的继发性甲状旁腺功能亢进者,由医生结合钙磷和PTH水平决定。
★ 维生素D缺乏、慢性肾病、牙周炎
牙周炎不只是牙齿没刷干净,而是口腔菌群失衡与免疫炎症共同作用的结果,常表现为牙龈出血、口臭、牙周袋加深和牙齿松动。
现有观察性研究总体发现,血清25(OH)D水平与牙周炎症程度呈负相关,也就是维生素D较低的人更容易出现牙龈炎症或较严重的牙周指标。美国NHANES III调查也观察到了低维生素D与牙周炎症之间的关联。
慢性肾病患者常存在维生素D活化不足、钙磷代谢紊乱、继发性甲状旁腺功能亢进以及慢性炎症,这些变化可能削弱口腔免疫防御,并影响牙槽骨代谢,使牙周炎更容易发生或加重。
反过来,牙周炎带来的持续炎症和细菌成分入血,也可能增加全身炎症负担,对肾功能产生不利影响。两者共同涉及维生素D不足、氧化应激和免疫反应异常,因此适合放在一起讨论。
编辑
一项系统综述与Meta分析发现,慢性肾病人群的牙周炎患病率约为非慢性肾病人群的2倍,牙周袋深度和牙周附着丧失也更明显。
大型队列研究表明,牙周病与肾功能之间存在双向因果关系,牙周浸润表面积(PISA)增加10%与eGFR降低3.0%相关,eGFR(估计肾小球滤过率)降低10%导致PISA增加25.0%。
目前证据主要来自观察性研究,只能说明慢性肾病、维生素D不足与牙周炎相互关联,还不能证明补充维生素D可以直接治疗牙周炎或延缓肾功能下降。
★ 脂肪肝与肝脏代谢
肝脏是维生素D代谢的重要场所,摄入或皮肤合成的维生素D需要先在肝脏转化为血液中主要检测的25(OH)D。
长期饮酒、脂肪肝和肝功能异常又常伴随饮食问题、消化吸收下降及户外活动减少,因此低维生素D既可能是肝脏疾病的伴随结果,也可能进一步影响炎症和肠-肝轴稳定。
编辑
2024年一项结合临床与动物实验的研究发现,酒精性脂肪肝患者的25(OH)D水平较低,统计分析提示较高的25(OH)D与较低的患病风险相关。
在慢性酒精性肝损伤小鼠中,维生素D缺乏进一步改变肠道菌群,降低肠上皮连接蛋白Occludin和E-cadherin,使屏障稳定性下降;同时增加肝脏和结肠中TNF-α、IL-1β、IL-6、IL-8及CCL2等炎症信号,并增强NF-κB通路活化,从而加重酒精相关肝损伤。
饮酒和维生素D不足共同削弱肠道屏障,使LPS等微生物成分更容易经门静脉到达肝脏,继而放大肝脏炎症。
因此,对于长期饮酒、脂肪肝或肝酶反复升高的人,可以结合维生素D水平、肝功能、血糖血脂以及肠道屏障、LPS和胆汁酸代谢状态进行评估,判断是否存在维生素D不足与肠-肝轴异常叠加的情况。
脂溢性皮炎:反复出油脱屑,关注VD状态
脂溢性皮炎常发生在头皮、眉间、鼻唇沟和耳周等皮脂分泌较旺盛的部位,表现为红斑、油腻性鳞屑和瘙痒。它并不只是“头皮太油”或“清洁不到位”,目前认为其发生与皮脂环境、皮肤屏障、免疫反应以及以马拉色菌为代表的皮肤微生态共同有关。
编辑
维生素D可能通过免疫调节、表皮细胞分化和屏障维持参与这一过程。
一项纳入53名脂溢性皮炎患者和60名健康对照者的研究发现,患者中严重维生素D缺乏的比例为52.8%,高于对照组的25.8%。
另一项纳入71名患者和71名健康对照者的研究得出了更复杂的结果:两组总体维生素D水平差异没有达到统计学显著性,但在脂溢性皮炎患者内部,病情较重者的维生素D水平相对更低。该研究同时发现患者的血清锌水平较低。
神经精神与神经发育问题
★ 成人抑郁:低维生素D可能与多条情绪调节通路相交
抑郁症的发生涉及遗传、压力、生活事件、睡眠、饮食、神经递质和炎症等多重因素。
维生素D受体及相关代谢酶存在于脑组织中,维生素D可能参与血清素、多巴胺和去甲肾上腺素等神经递质调节,同时影响脑源性神经营养因子、神经可塑性、应激轴和神经炎症。
编辑
维生素D与日照不足、抑郁和季节性情感障碍存在关联。
一项观察性研究中,维生素D缺乏者出现临床显著抑郁的可能性约为维生素D充足者的3.5倍。
低维生素D与更高的季节性情绪障碍发生可能性有关;部分研究也观察到冬季维生素D水平和季节性症状之间的关系。
低维生素D与抑郁同时出现,不代表低维生素D一定导致抑郁。反向因果同样可能存在。例如,抑郁的人可能更少出门、更少运动、饮食质量下降,进而导致维生素D水平降低。
研究没有发现冬季补充后症状显著改善,也有小型研究报告高剂量注射后症状改善。
有研究认为,光照疗法的证据更直接。光照可以影响褪黑素节律和生物钟,一些研究显示,晨间强光治疗能减轻疲劳、情绪低落、嗜睡、食欲增加和碳水化合物渴求等季节性症状。
维生素D更适合被看作抑郁评估中的一个可能因素和辅助干预点,对于同时存在长期情绪低落(尤其是秋冬明显加重)、日照不足、疲劳、睡眠问题、肥胖、食欲或排便改变、饮食限制的人,可以结合血清25(OH)D、营养状况及肠道表现进行整体评估。若维生素D偏低,纠正不足可能有助于改善整体健康环境。
★ADHD:低维生素 D 可能与部分症状相关
注意缺陷多动障碍,也就是 ADHD,主要表现为注意力难以维持、活动过多和冲动控制困难。它的发生涉及遗传、脑发育和多种环境因素。
编辑
研究提示,维生素 D 可能参与神经细胞分化、神经营养因子合成、多巴胺系统发育、突触可塑性和神经炎症调节。这些过程与注意力、执行功能和冲动控制有关,因此维生素 D 与 ADHD 之间具有一定的生物学联系。
有临床对照研究发现,ADHD 儿童和青少年的维生素 D 水平低于匹配的健康儿童。
动物研究中,孕期和出生后维生素 D 缺乏的动物也出现了多动、空间学习能力下降和注意调节异常等类似 ADHD 的表现。
★自闭症:维生素 D与早期脑发育和症状特征有关
自闭症的发生涉及遗传和多种环境因素。
一些研究报告,ASD 儿童和青少年的维生素 D 水平相对较低,维生素 D 缺乏可能与更明显的 ASD 症状同时出现。
但这类研究主要属于观察性研究。ASD 儿童可能存在偏食、饮食种类有限、户外活动较少或生活方式差异,这些因素本身也可能导致维生素 D 水平降低。
母体孕期维生素 D 与孩子 ASD 特征有关吗?
Generation R 前瞻性出生队列3937名儿童研究发现,母亲孕期血清维生素 D 水平较高,儿童后来表现的 ASD 特征相对较少(β=−0.07;p<0.008)。
另一项关于孕期维生素 D 缺乏的研究发现,母体孕期维生素 D 水平较低,与儿童 5 岁时更多的 ASD 相关特征、行为问题和较弱的社会能力有关。
对 ASD 儿童而言,发现维生素 D 缺乏时可以进行规范纠正,主要是满足儿童生长发育健康需要。
注:由于研究方法不统一,部分结果存在矛盾,目前不能确认维生素 D 对 ADHD或ASD 具有预防或治疗作用。
年龄增长与特殊生理阶段
★ 衰老,免疫衰老与肠道失衡容易叠加的阶段
有一类人不一定患有明确疾病,但身体环境正在发生较大的生理变化。
一方面,胸腺萎缩,初始T细胞和B细胞减少,身体识别新病原体、应对感染和接种疫苗后的反应能力下降;另一方面,衰老细胞、氧化应激和代谢异常不断积累,使身体长期处于轻度炎症状态。这两种变化分别被称为“免疫衰老”和“炎症性衰老”,与感染、心血管疾病、代谢异常、虚弱及多种年龄相关疾病有关。
维生素D参与先天免疫和适应性免疫调节,能够影响T细胞、B细胞、巨噬细胞、树突状细胞的反应,也参与抗菌肽生成和黏膜屏障维持。
编辑
肠道也会随年龄发生改变。部分研究观察到,双歧杆菌、梭菌目及其他产短链脂肪酸菌减少,而变形菌门和肠杆菌科等机会性菌增多;黏液层、肠道蠕动和屏障修复能力也可能下降。短链脂肪酸减少和屏障通透性升高,会使肠道对免疫系统的调节能力减弱,并可能推动全身低度炎症。维生素D又能通过VDR影响屏障和菌群环境,而部分菌群代谢物也可能反过来支持VDR信号,形成双向联系。
老年人更值得关注维生素D和肠道,并不是因为年龄本身等于缺乏,而是多种风险更容易同时叠加:户外活动日照可能减少、食欲下降、饮食单一、肝肾转化下降、慢性疾病、药物使用以及消化吸收问题。此时,维生素D偏低可能与免疫反应减弱和慢性炎症相互叠加。
★ 更年期,是多种风险容易叠加的阶段
雌激素下降后,腹型肥胖、胰岛素抵抗、血脂异常、心血管和骨量下降风险更容易同时增加。维生素D不足可能进一步放大这些问题,因此更年期女性除了关注骨骼,也应结合腰围、血糖、血脂和维生素D评估整体代谢状态。
若存在腹型肥胖、血糖或血脂升高、脂肪肝、长期饮酒,有些伴有腹胀、排便异常,维生素D补充效果不理想,可以结合菌群报告中的肠道屏障、LPS、短链脂肪酸和胆汁酸代谢进行观察,从而判断干预重点应放在维生素D补充还是改善其他指标,辅助找到优先级最重要的进行干预。
编辑
★ 妊娠也是一种身体环境迅速变化的阶段
妊娠期的免疫耐受、营养需求和母体菌群都会调整,维生素D状态与母婴健康之间的关系也受到关注。
2025年一项日本先导研究将62名孕妇分为每日200、400和1000 IU维生素D₃组,从孕早期开始干预8周。血清25(OH)D随剂量增加,1000 IU组的 Fusicatenibacter 相对丰度在干预后上升。
这是一项样本较小的先导研究,不能据此认定Fusicatenibacter是孕期维生素D疗效标志,也不能把研究剂量直接转化为孕妇的个人补充建议。
总的来说,维生素D之所以反复被提及,并不是因为它能够单独解释这些问题,而是因为它同时参与免疫调节、黏膜屏障、代谢和炎症反应。对血清25(OH)D不足的人,合理纠正低水平具有基础健康价值。
有些疾病直接影响维生素D的消化吸收,有些与肠道屏障和免疫耐受有关,还有一些更多涉及菌群代谢、肠-肝轴或肠-脑轴。接下来,我们将进一步说明具体怎么评估,如何看指标,怎样找到更适合自己的评估重点。
维生素D评估除了看“缺不缺”,还要区分两个层面:一个是身体当前实际处于什么水平,另一个是日常饮食和肠道环境能否提供稳定支持。
血清维生素D,了解体内维生素D的总体水平
血清25-羟维生素D,也就是25(OH)D,是目前评估体内维生素D状态最常用的指标。
但25(OH)D是告诉我们结果,不能单独解释这个结果是怎样形成的。同样是水平偏低,有的人是日照和摄入不足,有的人可能存在吸收障碍、肥胖、肝肾功能异常或药物影响。
如果25(OH)D明显偏低,或规律补充后变化仍不理想,还可以结合血钙、血磷、甲状旁腺激素以及肝肾功能,进一步了解维生素D的吸收、转化和钙磷代谢情况。
身体线索,有没有消化吸收相关问题
检测结果需要与身体表现和既往病史放在一起理解。
因此,两个血清25(OH)D水平相同的人,背后的原因可能不同。只看数值而不看形成原因,容易出现反复补充却难以长期维持的情况。
菌群维生素D营养分值:看饮食和肠道端的支持能力
肠道菌群检测报告中的维生素D评估,往往是根据近期膳食摄入和菌群相关代谢能力计算得到的相对值。
它更多回答的是:
日常饮食能否提供相对稳定的营养来源?
当前菌群和肠道环境是否有利于相关营养的代谢与利用?
菌群检测报告中除了菌群平衡、多样性、核心菌属、有益菌和潜在有害菌,还可以观察肠道屏障、炎症和产气状态,以及丁酸、丙酸、乙酸等短链脂肪酸、次级胆汁酸、维生素与微量营养素代谢、膳食营养结构和相关健康风险。
这些可以帮助理解维生素D所处的饮食和微生态背景。
如何结合血液与肠道菌群检测结果?
血清25(OH)D反映体内当前的维生素D状态;菌群报告中的维生素D营养分值,则是根据近期膳食摄入和菌群相关代谢能力计算得到的相对值。两者观察的是同一营养过程的不同侧面,既有联系,也不能相互替代。
补充剂、日照、体脂、消化吸收、遗传差异、肝肾功能和药物等因素,都可能使两项结果出现不一致,不一致是提示维生素D从摄入、吸收到转化和利用的过程中,可能受到不同因素影响。
如果血清25(OH)D和菌群营养分值都偏低,说明体内维生素D不足,同时日常饮食或肠道端的营养支持也可能不够理想,在合理补充的同时,还应关注饮食结构和肠道环境。若两项结果不一致,则需要结合日照、补充剂使用、身体表现,以及肠道屏障、胆汁酸、短链脂肪酸和菌群结构等信息进一步分析。
这些信息可以帮助判断,当前更需要纠正维生素D不足,还是还应同步改善饮食和肠道环境。至于是否需要益生元、益生菌或其他干预,则应结合完整的菌群报告和个体情况决定。
维生素D干预至少包含两个层面:
对于日照和饮食来源不足、肠道状态相对稳定的人,干预重点可以放在维生素D本身。
如果本身存在排便异常、肠道屏障、胆汁酸、短链脂肪酸或菌群结构方面的问题,则需要在补充维生素D的同时,为它改善进入身体后的肠道环境。
在了解怎么补充之前,我们先看一下维生素D的参考摄入量。
参考摄入量
按照《中国居民膳食营养素参考摄入量(2023版)》:
需要注意,参考摄入量通常指食物与补充剂共同提供的维生素D,并不是在日常饮食之外必须额外服用的剂量。
关于400~600 IU能否满足不同人群的需要,目前仍有讨论。
有随机对照试验提示,对一般成年人而言,每日补充2000 IU维生素D3通常足以使大多数人达到较充分的25(OH)D水平,并具有较好的长期安全性。
作者认为,传统指南这些400-800IU的剂量可能只能满足较低的维持目标,且未充分考虑肤色、地区、肥胖和个体反应差异。
为什么作者主张2000 IU/日?
作者汇总随机对照试验后认为,每日补充2000 IU维生素D3,可以让:
超过99%的普通成年人达到25(OH)D高于20 ng/mL;
超过90%的普通成年人达到25(OH)D高于30 ng/mL。
编辑
doi.org/10.3390/nu16030391
2000 IU/日总体安全吗?
在VITAL研究中,约2.6万名中老年人每日补充2000 IU维生素D,平均持续5.3年,未发现明确的维生素D中毒信号。
2000 IU/日可以自行补充吗?
从现有大型试验看,每日2000 IU对多数成年人具有较好的耐受性。
但同时,文章也提出几个风险提示:
总的来说,低至中等剂量、每日稳定补充,优于不定期使用很大的冲击剂量。2000 IU/日最可靠的价值,是提高并维持维生素D水平、预防缺乏,而不是治疗某一种特定慢性疾病。
推荐摄入量不等于纠正缺乏的剂量
推荐摄入量主要用于维持健康状态,而不是治疗已经发生的维生素D缺乏。如果血清25(OH)D已经明显偏低,仅按照日常参考摄入量补充,未必能够在短期内将水平恢复到合适范围。
此时需要根据血清25(OH)D、年龄、体重、基础疾病和用药情况决定补充剂量,并在一段时间后复查。临床上用于纠正缺乏的阶段性剂量,可能高于日常推荐摄入量,但这并不意味着可以长期自行使用大剂量。
饮食干预:既补充维生素D,也要支持菌群
脂肪鱼类,如三文鱼、鳟鱼、鲭鱼和沙丁鱼,是较重要的天然来源;蛋黄、动物肝脏和部分奶酪中也含有少量维生素D。菌菇主要提供维生素D₂,此外,还可以关注明确标注添加维生素D的牛奶、谷物或其他强化食品。
其他肠道友好型食物
全谷物、燕麦、豆类、蔬菜、水果、坚果和种子虽然通常不是维生素D的直接来源,却能够为肠道菌群提供膳食纤维、抗性淀粉和植物多酚。换句话说,一部分食物负责增加维生素D来源,另一部分食物则负责改善它所处的肠道环境。
编辑
比较实用的饮食思路
一方面增加鱼类、蛋类、菌菇和强化食品,
另一方面保持植物性食物的种类与可发酵纤维。
地中海饮食
地中海式饮食正体现了这种组合思路:鱼类和适量乳制品提供维生素D及优质脂肪,全谷物、豆类、蔬菜、水果、坚果和橄榄油则提供膳食纤维、不饱和脂肪酸与植物多酚。与长期依赖某一种补充剂相比,这类饮食模式更接近对营养摄入、代谢状态和菌群生态的整体管理。
特殊人群
对于饮食限制较多、长期低脂饮食、素食或不摄入强化乳制品的人,还需要特别检查维生素D来源是否长期不足。
天然食物中的维生素D有限,因此当血清25(OH)D已经明显偏低时,仅靠调整食谱往往需要更长时间,必要时仍需配合补充剂。
日晒干预:重要,但人群日照标准不统一
皮肤在UVB照射下可以合成维生素D₃,因此日晒是维生素D的重要来源之一。
但实际合成效率受到季节、纬度、天气、日照时间、肤色、年龄、皮肤暴露面积和生活方式等多种因素影响。隔着普通玻璃晒太阳,也不能获得同样的UVB作用。
编辑
基于UV和维生素D关系的模型研究显示,在夏季、暴露较大皮肤面积的情况下,较短时间的户外暴露可能足以帮助维持维生素D;
但在冬季、中高纬度地区,当暴露皮肤面积只有约10%时,中午可能需要超过45分钟,而且地区间差异较大。
在避免晒伤的前提下增加规律户外活动,并将日晒理解为维生素D来源的一部分,而不是唯一方式。
对于长期居家、夜间工作、衣物遮盖面积较大,或者因疾病和药物需要严格防晒的人群,饮食和补充剂的重要性会相应提高。
补充剂干预:剂量之外,还要选对形式
常见营养补充剂包括维生素D₂和维生素D₃。两者均可提高25(OH)D,但D₃通常提升效率更高、维持时间更长,因此应用更广。
维生素D属于脂溶性维生素,随含有一定脂肪的正餐服用,有利于它形成混合胶束并在小肠吸收。比起偶尔补一次大剂量,规律服用通常更容易获得稳定的血清水平。
还要检查复合维生素、钙片、鱼肝油和单独维生素D制剂是否存在重复摄入。
对于肠道状态相对稳定的人,重点仍是保证来源充足并规律补充,不必额外叠加复杂的菌群干预。
若同时菌群检测提示屏障、短链脂肪酸、胆汁酸和菌群结构异常,则可以在纠正维生素D不足的基础上,进一步考虑膳食纤维、益生元、益生菌或合生元等协同方式。
维生素D + 益生菌
一项随机对照试验系统综述评估了益生菌与维生素 D 联合补充的健康获益,结果表明,与安慰剂、单独补充维生素 D 或单独补充益生菌相比,联合补充可带来更大的健康收益。联合补充可降低疾病严重程度,改善心理健康和代谢指标,包括胰岛素敏感性、血脂异常、低度炎症和氧化能力,并减少医疗服务的使用。
维生素D + 益生菌胶囊 → IBS改善
一项前瞻性、多中心、非干预性真实世界研究评估了三种益生菌联合维生素D对腹泻型或混合型肠易激综合征(IBS-D/IBS-M)的作用。
三种益生菌为:
246名成人连续42天每日服用含3×10⁹CFU益生菌及10 μg维生素D的制剂,具有可评价数据的89名患者中,62.9%于第42天达到症状应答标准,IBS严重程度显著下降。症状改善同时与生活质量提升、焦虑和抑郁减轻及肠道相关焦虑降低密切相关。
维生素D + 益生菌胶囊 → 偏头痛改善
一项随机、安慰剂对照研究显示,成年受试者联合补充益生菌胶囊(每天 4.5×10¹¹CFU)和维生素 D(每两周 50,000 IU)共 12 周后,血清维生素 D 水平显著升高,偏头痛相关指标也得到改善。
该益生菌胶囊包含植物乳杆菌、干酪乳杆菌、嗜酸乳杆菌(L. acidophilus)、保加利亚乳杆菌(L. bulgaricus)、婴儿双歧杆菌、长双歧杆菌、短双歧杆菌和嗜热链球菌(Streptococcus thermophilus)。
维生素D + 益生菌胶囊 → 多样性改变
另一项研究发现,联合补充益生菌与胆钙化醇(维生素 D3)4 周后,肠道菌群的 α 多样性和 β 多样性,菌群组成发生改变,涉及乳杆菌科、拟杆菌属、产菊粉罗斯拜瑞菌(Roseburia inulinivorans)、普雷沃氏菌属等。
所用益生菌包括嗜酸乳杆菌 W22、乳酸乳球菌 W58、短乳杆菌 W63、两歧双歧杆菌 W23 和乳双歧杆菌 W51。
维生素D + 益生菌胶囊 → 精神分裂症改善认知
Mohammadi 等人发现,精神分裂症患者联合补充益生菌和维生素 D 共 12 周后,认知功能显著改善,总胆固醇和 C 反应蛋白水平下降。所用益生菌包括嗜酸乳杆菌、鼠李糖乳杆菌、罗伊氏乳杆菌、副干酪乳杆菌、长双歧杆菌和凝结芽孢杆菌,每种剂量为 2×10⁹ CFU;维生素 D 剂量为每日 400 IU。
维生素D + 益生元
益生元促进维生素D3前体合成
补充益生元,低聚果糖(FOS)和菊粉,可调节肠道菌群,包括多形拟杆菌(Bacteroides thetaiotaomicron)和普拉梭菌(Faecalibacterium prausnitzii),从而促进维生素 D3 前体的生物合成。
维生素D + 菊粉、低聚果糖 → 乳糜泻维生素D改善
一项随机、双盲、安慰剂对照的初步营养干预研究(n=34),每日剂量为800或1000 IU;益生元组额外每日摄入10 g Synergy 1,连续3个月。注:Synergy 1由短链低聚果糖和长链菊粉按1:1比例组成,安慰剂组摄入等量麦芽糊精。
干预3个月后,益生元组血浆25-羟维生素D水平由20.36 ng/mL升至28.57 ng/mL,中位数提高约42%(p < 0.05);维生素D达到最佳水平的儿童比例由17%升至46%。安慰剂组的维生素D水平未出现显著变化。
研究者推测,菊粉和低聚果糖可能通过调节肠道菌群、促进短链脂肪酸生成及改善肠上皮功能,进而提高维生素D的肠道吸收。
维生素D + 槲皮素 → 抗炎、TNF-α 下调
槲皮素是洋葱、葡萄皮和籽中的主要黄酮类物质,也是目前已知抗炎活性最强的天然黄酮之一。维生素 D 与槲皮素都具有抗炎作用,两者可能通过不同的作用环节,共同影响慢性炎症相关通路。
编辑
这种协同配方在缓解肺部疾病(如肺纤维化、严重呼吸道感染等)及全身性慢性炎症中展现出极高的干预潜力。
除了协同抗炎,槲皮素还对维生素D本身具有保护作用。
2021年一项体外研究发现,维生素D对氧气和高温敏感,而槲皮素能够抑制维生素D的分解,减轻高温和pH值升高对维生素D降解的影响。这意味着,从制剂配伍的角度,两者可能存在相互稳定的作用。
日常摄入洋葱、葡萄(带皮)或荞麦等槲皮素来源,同时保持鱼类和蛋类的摄入以补充维生素D。
除了槲皮素外,研究人员还提出维生素 D与黄酮类、多酚类及其他植物化学物质在抗炎、免疫和肠道菌群方面可能具有整体协同或互补作用。橙皮苷、柚皮苷、白藜芦醇、水飞蓟素、姜黄素、儿茶素、可可多酚等都被纳入。
维生素D + 姜黄素 → 脑健康、抗衰老
有研究人员认为,姜黄素可以作为配体与维生素D受体VDR结合,并提到维生素D₃与姜黄素联合,通过VDR及抗炎通路形成作用互补,并具有潜在的脑健康和抗衰老价值。
维生素D + 齐墩果酸 → 支持骨代谢
齐墩果酸是葡萄表面蜡质层等植物来源中的一种三萜类化合物。
齐墩果酸可能通过影响维生素D代谢酶,提高活性维生素D信号,从而与维生素D共同支持骨代谢。
维生素D + 白藜芦醇 → 增强维生素D受体信号
细胞实验显示,白藜芦醇可增强维生素D受体(VDR)介导的转录活性,并与活性维生素D3产生协同作用,促进VDR与视黄酸X受体(RXR)形成异源二聚体,从而加强维生素D相关基因信号。
其可能机制包括提高活性维生素D与VDR的结合、调节RXR活性,以及通过激活SIRT1影响核受体功能。但目前主要属于细胞和分子机制证据,尚不能直接等同于人体临床获益。
维生素D + 其他微量营养素
维生素D + 维生素E → 原发性痛经改善
一项双盲、随机对照试验纳入106名、血清25(OH)D ≤30 ng/mL的15–35岁原发性痛经女性。
编辑
与安慰剂组相比,联合补充后原发性痛经疼痛和经前综合征(PMS)均显著改善:
注:研究未设置“仅维生素D”或“仅维生素E”组,因此只能说明该联合方案有效,不能确定维生素D和维生素E各自的独立作用,或证明二者存在协同效应。
结果也主要适用于维生素D不足的原发性痛经女性,不能直接外推到维生素D水平正常的人群。
维生素D + 维生素B → 睡眠、肠道改善
神经系统疾病患者补充维生素D和维生素B复合物 3 个月后,睡眠得到改善、疼痛感降低、肠道症状缓解。
维生素D + 维生素K → 支持骨代谢
维生素D₃和维生素K的摄入对钙吸收和骨代谢通路很重要。两者在骨骼健康中承担不同任务:
维生素D + 叶酸 → 轻度阿尔茨海默中探索
维生素D₃与叶酸可能分别从神经炎症调节和同型半胱氨酸代谢两个方向支持脑健康,已有研究探索其在轻度阿尔茨海默病中的联合应用。
维生素D + 其他 → 慢性扁桃体炎改善
腺样体–扁桃体肥大是导致原本健康儿童上气道阻力增加和OSA的最常见异常之一。在88名4-12岁、有SDB症状史且预测OSA风险问卷评分较高的儿童中,腺样体和/或扁桃体肥大者维生素D 缺乏的频率,高于无咽部淋巴组织肥大者。
另一项前瞻性试验中,慢性扁桃体炎儿童接受了一种口服补充剂治疗,该补充剂含有黑接骨木、锌、热灭活嗜酸乳杆菌(Lactobacillus acidophilus)、阿拉伯半乳聚糖、维生素D、维生素E、维生素C。
与“观察等待”策略相比,口服该复合补充剂治疗与扁桃体炎和发热发作次数减少、扁桃体体积缩小相关。
维生素D + 镁 → ADHD改善
一项双盲试验纳入 66 名儿童,连续 56 天同时补充维生素 D 和镁。干预后,儿童血清维生素 D 和镁水平升高,部分情绪、焦虑应对和社会行为指标有所改善。
注: 这些研究主要观察生物标志物,目前不能把维生素 D 作为 ADHD 的独立治疗方法,也不应替代规范的行为干预和药物治疗。
维生素D + 药物
维生素D + 常规治疗 → 过敏性鼻炎改善
一项系统综述与荟萃分析纳入5项随机对照试验、共370名过敏性鼻炎患者,评估维生素D作为辅助治疗与常规治疗联用的效果。
常规治疗包括:
维生素D的补充方案为:
亚组分析显示,维生素D联用非糖皮质激素治疗(免疫治疗或抗组胺药)可显著减轻过敏性鼻炎症状(SMD=−0.56,95% CI −0.90−0.90 至 −0.23−0.23),研究间异质性较低(I2=0%I2=0%)。
维生素D联用鼻用糖皮质激素也有症状改善趋势,但合并结果未达统计学显著性,且异质性很高。因此,现有证据提示维生素D可能更适合作为免疫治疗或抗组胺药的辅助方案。
维生素D+免疫检查点抑制剂→ 可能增强肿瘤免疫治疗效果
维生素D可能通过VDR信号调节PD-1、PD-L1和CTLA-4等免疫检查点分子,并影响CD8⁺ T细胞、Treg细胞和Th17细胞的平衡。因此,维生素D可能作为辅助因素,增强针对靶点的免疫检查点阻断治疗。
维生素D+雌激素 → 协同
维生素D可能促进雌激素产生,而雌激素又可能参与维生素D受体在中枢神经系统中的功能。与此同时,维生素D/VDR和雌激素/雌激素受体都能影响Th17细胞、IL-17以及PD-1/PD-L1相关免疫反应。
大豆异黄酮染料木黄酮(genistein)是一种植物雌激素,可以作为雌激素受体的激动剂。染料木黄酮可能通过雌激素受体通路,与维生素D/VDR调节网络发生间接联系,但直接协同作用尚未得到验证。
维生素D+PI3K/AKT/mTOR通路调节剂
维生素D可能通过VDR、PPAR、ESR以及PI3K/AKT/mTOR等通路调节免疫检查点分子。
文中提到的其他潜在联合措施包括:
这些成分可能降低PD-L1表达,或改变Treg/Th17分化,因此可能与免疫检查点抑制剂形成联合方案。
本文我们了解到,维生素D不仅仅是一种帮助钙吸收、维护骨骼健康的营养素,更是参与人体多系统调节的重要因素。
特别是当规律补充后指标依然偏低,需要跳出不断加量的思路,去看肠道微生态、消化吸收能力以及整体的代谢状态。打通了吸收与转化的内部通道,补进去的营养才能更好地转化为身体的防线。
随着“肠-脑轴”、“肠-肝轴”等前沿多组学研究的不断深入,研究人员正在逐渐厘清维生素 D 与肠道微生态之间更深层的调控网络。
未来对维生素 D 的评估将逐步结合个人的饮食结构、肠道菌群及其代谢物、遗传差异、炎症状态和疾病阶段,判断谁更容易缺乏、谁可能存在吸收或转化障碍,以及哪些人更可能从补充中获益。
在这一过程中,肠道菌群检测也可能从简单描述“有哪些菌”,进一步发展为帮助识别营养吸收和代谢环境、预测个体对不同干预措施的反应,并辅助制定更加精准的个体化健康方案。
维生素 D和益生菌、饮食模式及其他干预的协同组合是否稳定有效,仍需要更多长期队列研究和随机对照试验验证,但这代表了精准营养和个体化健康管理的重要方向。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
本文维生素D 辅助干预作为参考,不宜替代相关疾病规范的行为干预和药物治疗。
主要参考文献
Ullah H. Gut-vitamin D interplay: key to mitigating immunosenescence and promoting healthy ageing. Immun Ageing. 2025 May 19;22(1):20.
Badihi E, Sharifi P, Moradi A, Kamrani A, Hassanzadeh A, Soltani-Zangbar MS, Parsania S, Afandideh F, Ahmadian Heris J, Danaii S, Shahriar B, Sadough M, Chakari-Khiavi F, Teymouri Nobari S, Aghebati-Maleki L, Yousefi M. The effect of vitamin D supplementation and vaginal probiotics on fertility in women with recurrent implantation failure: A randomized clinical trial. Hum Immunol. 2025 May;86(3):111259.
Jahan-Mihan A, Stevens P, Medero-Alfonso S, Brace G, Overby LK, Berg K, Labyak C. The Role of Water-Soluble Vitamins and Vitamin D in Prevention and Treatment of Depression and Seasonal Affective Disorder in Adults. Nutrients. 2024 Jun 17;16(12):1902.
van Rooij D, Mou Y, White T, Voortman T, Jansen PW, Buitelaar JK. Prenatal Vitamin D, Multivitamin, and Folic Acid Supplementation and Brain Structure in Children with ADHD and ASD Traits: The Generation R Study. Nutrients. 2025 Sep 17;17(18):2979.
Abhishek F, Gugnani JS, Kaur H, Damera AR, Mane R, Sekhri A, Singh G, Kaur G. Dietary Interventions and Supplements for Managing Attention-Deficit/Hyperactivity Disorder (ADHD): A Systematic Review of Efficacy and Recommendations. Cureus. 2024 Sep 20;16(9):e69804.
Sailike B, Onzhanova Z, Akbay B, Tokay T, Molnár F. Vitamin D in Central Nervous System: Implications for Neurological Disorders. Int J Mol Sci. 2024 Jul 17;25(14):7809.
Kashiri A, Maghsoudloo N. Exploring the Impact of Vitamin D and Zinc Deficiencies on Seborrheic Dermatitis: A Comparative Study. Health Sci Rep. 2024 Dec 24;7(12):e70283. doi: 10.1002/hsr2.70283. PMID: 39720239; PMCID: PMC11667214.
Sharma M, Kalra S. Vitamin D and Menopause. J Pak Med Assoc. 2024 Apr;74(4):815-817.
Zhang P, Xu Q, Zhu R. Vitamin D and allergic diseases. Front Immunol. 2024 Jul 4;15:1420883.
Akbaş A, Kılınç F, Şener S, Hayran Y. Vitamin D levels in patients with seborrheic dermatitis. Rev Assoc Med Bras (1992). 2023 Jul 17;69(7):e20230022.
Kashiri A, Maghsoudloo N. Exploring the Impact of Vitamin D and Zinc Deficiencies on Seborrheic Dermatitis: A Comparative Study. Health Sci Rep. 2024 Dec 24;7(12):e70283.
Daley DK, Myrie SB. Diabetes and vitamin D: The effect of insulin sensitivity and gut microbial health. Adv Food Nutr Res. 2024;109:160-184.
Dampf Stone A, Batie SF, Sabir MS, Jacobs ET, Lee JH, Whitfield GK, Haussler MR, Jurutka PW. Resveratrol potentiates vitamin D and nuclear receptor signaling. J Cell Biochem. 2015 Jun;116(6):1130-43.
Hosseini MS, Talayeh M, Haghbin Toutounchi A, Hosseini A, Moradi N, Iranshahi S, Abdollahi Aliabadi F. Effect of vitamin D and E supplementation on pain relief and premenstrual symptoms in primary dysmenorrhea: a randomized controlled trial. BMC Womens Health. 2025 Sep 29;25(1):455. doi: 10.1186/s12905-025-04007-4. Erratum in: BMC Womens Health. 2025 Oct 24;25(1):516.
Peng B, Wang W, Gu Q, Wang P, Teng W, Shan Z. Effects of different supplements on Hashimoto’s thyroiditis: a systematic review and network meta-analysis. Front Endocrinol (Lausanne). 2024 Dec 4;15:1445878.
Moreira-Velasco JE, Contreras-Alvarado MF, Rammal H, Rivas D, Duque G. Beyond Calcium and Vitamin D: Exploring Creatine, β-Hydroxy-β-methylbutyrate, Prebiotics and Probiotics in Osteosarcopenia. Nutrients. 2025 Jul 16;17(14):2332.
Pludowski P, Grant WB, Karras SN, Zittermann A, Pilz S. Vitamin D Supplementation: A Review of the Evidence Arguing for a Daily Dose of 2000 International Units (50 µg) of Vitamin D for Adults in the General Population. Nutrients. 2024 Jan 29;16(3):391.
Hua R, Lam CS, Mok VCT, Cheung YT. Association between vitamin D supplement use and cognitive functioning: a longitudinal cohort study. BMJ Open. 2026 Jan 22;16(1):e106050.
Schiza S, Bouloukaki I, Kaditis A, Lombardi C, Bonsignore MR. Vitamin D deficiency: A forgotten aspect in sleep disorders? A critical update. Sleep Med. 2024 Sep;121:77-84.
Wang H, Gong W, Gao J, Cheng W, Hu Y, Hu C. Effects of vitamin D deficiency on chronic alcoholic liver injury. Free Radic Biol Med. 2024 Nov 1;224:220-231.
Cheng K, Hu Y, Li Y, Zhang Y, Wang J, Zhang C. Vitamin D as a central modulator of thyroid diseases: mechanisms and clinical implications. Front Immunol. 2026 Jan 26;17:1748648.
Bilezikian JP, di Filippo L, Bianchi A, Bikle DD, Binkley N, Bouillon R, Fassio A, Frara S, Jones G, Latella G, Laterza L, Graniel IP, Taccari F, Trasciatti S, White JH, Giustina A. Vitamin D in Gut and Systemic Immune Tolerance and in Infections’ Risk: An International Evidence-Based Consensus Statement. Rev Endocr Metab Disord. 2026 Apr;27(2):183-200.
Chen W, Liu L, Hu F. Efficacy of vitamin D supplementation on glycaemic control in type 2 diabetes: An updated systematic review and meta-analysis of randomized controlled trials. Diabetes Obes Metab. 2024 Dec;26(12):5713-5726.
Huang C, Li Z, Shen W, Luo M, Lin F. The bile acid-gut microbiota-vitamin D axis: new insights into biliary atresia. Front Cell Infect Microbiol. 2026 Jun 23;16:1847110.
Zeb F, Osaili T, Hashim M, Alkalbani N, Papandreou D, Cheikh Ismail L, Naja F, Radwan H, Hasan H, Obaid RS, Savvaidis I, AlBlooshi S, Alam I. Effect of Vitamin D Supplementation on Human Gut Microbiota: A Systematic Review of Randomized Controlled Trials. Nutr Rev. 2026 Jun 1;84(6):1157-1166.
谷禾健康
随着口腔微生物组研究的深入,牙周炎的病因认识已由“单一优势病原菌致病”逐渐转向“多菌种协同与菌群失调”模式。传统上,牙龈卟啉单胞菌、齿垢密螺旋体和福赛斯坦纳菌组成的“红色复合体”被认为是牙周炎的重要相关菌,但越来越多的测序研究发现,一些难培养、低丰度且长期被忽视的微生物同样可能参与牙周组织破坏。其中,龈沟产线菌(Filifactor alocis)是近年来受到广泛关注的新兴牙周相关菌。
Filifactor alocis于1985年首次从人类牙龈沟中分离,现通常归类于厚壁菌门、消化链球菌科。该菌为革兰氏阳性、无糖发酵型专性厌氧杆菌。其主要定植于龈下菌斑、深牙周袋及炎症明显的牙龈沟环境。与健康牙周部位相比,其在慢性牙周炎、侵袭性牙周炎、活动性病变及临床附着丧失部位中的检出率和相对丰度通常明显升高。一项研究发现,其在广泛性侵袭性牙周炎患者检出率约为 77.8%;在慢性牙周炎患者检出率约为 76.7%。
龈沟产线菌能够适应牙周炎牙周袋内低氧、富含血液、龈沟液、组织降解产物及宿主蛋白的环境。尽管免疫细胞浸润、活性氧和活性氮增加,以及pH、营养和氧化还原状态波动会对多数专性厌氧菌形成压力,其却凭借较强的氧化应激耐受能力持续生存。其超氧化物还原酶FA796、Rubrerythrin和AhpC等防御系统可清除过氧化氢、减轻氧化损伤,是其适应炎症性牙周袋并实现扩增的重要基础。
本文将从分类与形态、生长与定植生态、流行病学、代谢与耐药、菌群—宿主互作、牙周炎机制及口腔外关联等方面,系统梳理龈沟产线菌的研究进展,以全面呈现其作为新兴协同型牙周相关菌的研究意义。
龈沟产线菌(Filifactor alocis)(简称 F. alocis)于1985年首次从人类牙龈沟中分离获得,最初被命名为 Fusobacterium alocis。1999年,研究者依据16S rRNA基因序列及系统发育分析,发现其与梭杆菌属并无足够近的亲缘关系,因而将其重新归入 Filifactor 属。
目前,F. alocis通常被归类为厚壁菌门(Firmicutes;现亦称 Bacillota)下梭菌目(Clostridiales)消化链球菌科(Peptostreptococcaceae)中的Filifactor 属。从系统发育角度看,它与梭菌类群、部分梭杆菌相关类群以及其他晚期牙周定植菌存在一定亲缘联系,但在细胞形态和分类学地位上,F. alocis 是一种革兰氏阳性专性厌氧杆菌,并不属于典型的革兰氏阴性梭杆菌。
随着口腔微生物组和分子检测技术的发展,F.alocis 被认为是牙周炎相关菌群中的重要新兴成员。
1
细胞形态
F. alocis表面形态
doi: 10.1177/0022034514538283.
2
适宜生长环境
3
主要定植部位
龈沟产线菌(Filifactor alocis)最主要的天然栖息部位是牙龈沟和龈下牙周袋。尤其容易出现在:
▸ 牙周袋中的有利条件
这些条件对普通专性厌氧菌可能具有抑制作用,但对 F. alocis 反而可形成选择优势。
▸ 氧化应激环境中的选择优势
F. alocis 的突出特征是:
这种特性可能解释其在严重牙周炎病灶中丰度较高,而在健康部位丰度很低。
▸ 其他部位
除牙周袋外,还可在以下部位检出:
4
人群中的流行率和影响因素
▸ 健康人群中丰度极低
多数研究显示:
影响健康人群检出结果的因素包括:
部分研究和综述指出,吸烟者即使临床上没有明显牙周炎,也可能检出较高水平的 F. alocis。这可能与吸烟造成的局部缺氧、免疫改变和菌群失调有关。
▸ 牙周炎患者中丰度显著升高
已有研究观察到:
•F. alocis在慢性牙周炎和广泛性侵袭性牙周炎中明显增加;
•在深牙周袋、活动性病变和附着丧失部位更常见;
•与牙周探诊深度和临床附着丧失呈正相关;
•治疗后菌量下降通常与临床改善相伴。
一项常被引用的研究报道:
注:这些数字来自特定研究队列,并非全球统一流行率,不能直接代表所有国家和人群。
▸ 与疾病严重程度的关系
F. alocis 丰度与以下临床指标呈正相关:
▸ 糖尿病牙周炎患者F. alocis水平更高
多项研究显示,糖尿病伴牙周炎患者的 F. alocis 水平通常高于无糖尿病牙周炎患者,但并非所有研究结果一致。
目前较合理的解释是:糖尿病可能为 F. alocis 的定植和持续生存提供更适宜的环境,并放大其与牙周组织破坏之间的联系。
▸ 吸烟和妊娠人群中也可见F. alocis水平升高
F. alocis 在部分研究中与吸烟者的龈下菌群改变相关。
妊娠期糖尿病和牙龈炎患者中也曾观察到其增加。
这些结果提示其可能受宿主代谢、激素、炎症和生活方式共同影响。
5
代谢能力
▸ 无糖发酵和蛋白质依赖
F. alocis 属于无糖酵解型或无糖发酵型厌氧菌。与依赖葡萄糖发酵的细菌不同,它主要通过降解:蛋白质、多肽、氨基酸、唾液和龈沟液中的糖蛋白。
这使它特别适应牙周袋中“蛋白质丰富、可发酵糖有限”的环境。
▸ 可利用多种氨基酸
研究显示,F. alocis 可利用多种氨基酸,包括:
-精氨酸;
-赖氨酸;
-半胱氨酸;
-缬氨酸;
-苏氨酸;
-异亮氨酸;
-甘氨酸。
其中精氨酸、赖氨酸和半胱氨酸对其生长较为重要。
精氨酸代谢可产生NH₃中和牙周袋酸性、缓冲混合菌群产酸;提高局部 pH 利于自身及 P. gingivalis 存活;提供氮源。
▸ 蛋白酶和肽酶
基因组中预测存在约15种蛋白酶或肽酶,包括:
这些酶可能参与:
▸ 唾液酸酶
多个 F. alocis 菌株具有唾液酸酶活性。其作用可能包括:
游离唾液酸具有一定的活性氧清除作用,因此该代谢过程可能兼顾营养获取和氧化应激缓冲。
6
抗生素敏感性
编辑
影响因子:3.893
Filifactor alocis 临床分离株对多数常用抗菌药物仍表现出较高敏感性。该研究分析了来自牙周炎、种植体周围黏膜炎或种植体周围炎患者的Filifactor alocis临床分离株,并检测了以下9种药物:阿莫西林、阿莫西林-克拉维酸、阿奇霉素、克林霉素、环丙沙星、多西环素、米诺环素、甲硝唑、四环素。
F.alocis的抗生素特征可以总结为:
在复杂的口腔微生态中,龈沟产线菌(Filifactor alocis)并非孤立存在,而是能与其他细菌及宿主细胞持续进行“协同或博弈”。这种菌群之间相互促进、细菌与宿主相互塑造的动态关系,使龈沟产线菌逐渐成为理解牙周炎持续感染和组织破坏的重要切入点。
与 Porphyromonas gingivalis 的协同
这是目前研究较为充分的一种菌间协同关系,主要涉及 F. alocis 与 P. gingivalis 的相互作用。
编辑
影响因子:3.201
▸ 能形成更强生物膜,显著增强黏附和侵袭能力
共培养实验表明,与单独培养相比,F.alocis与 P.gingivalis共同生长时可形成更丰富、更稳定的混合生物膜,总生物膜量也会增加。
同时,细菌对牙龈上皮细胞的黏附能力和侵袭能力明显增强,其中 P. gingivalis 的细胞侵入能力尤为突出。
▸ 改变氧化应激状态、增强牙周炎中的致病能力
研究还发现,两种细菌可以共同进入同一个由宿主细胞形成的内吞囊泡中。此外,共培养还会改变F.alocis 中与氧化应激防御和细胞黏附相关蛋白的表达。并且F. alocis 对过氧化氢诱导的氧化应激比P.gingivalis更耐受,且氧化应激可促进其生长。
总体而言,F. alocis 与 P. gingivalis 之间可能存在相互促进的协同作用,使二者更容易形成生物膜、黏附并侵入牙龈上皮细胞,从而增强其在牙周炎病灶中的持续定植和致病潜力。
注:另一方面,P. gingivalis 的Mfa1小菌毛也可能对F.alocis的积累产生抑制,因此二者关系不是简单的“互相促进”,而是包含竞争、协同和生态位调节。
与A. actinomycetemcomitans的共存
编辑
影响因子:4.123
现有证据表明,龈沟产线菌(Filifactor alocis)与伴放线聚集杆菌(Aggregatibacter actinomycetemcomitans)之间可能存在阶段性、协同性的生态关系,尤其与局限性侵袭性牙周炎及牙周附着丧失有关。
▸ 两者具有较明显的共存关系
一项针对156例牙周炎患者的研究发现:
A. actinomycetemcomitans 检出率为 23.1%;
在检出 A. actinomycetemcomitans 的患者中,94.4%同时检出 F. alocis;其中 77.8% 的患者携带高水平 F. alocis。
▸ 可能共同参与牙周组织破坏
早期纵向研究发现,A. actinomycetemcomitans、Streptococcus parasanguinis 和 F. alocis 可共同出现在未来发生骨丧失的部位,提示这一菌群组合可能是局限性侵袭性牙周炎相关的微生物群落。
此外,研究显示,F. alocis 高丰度、ftxA 基因阳性以及 A. actinomycetemcomitans 同时存在时,临床附着丧失进展更为明显。尤其是 F. alocis 与非JP2型 A. actinomycetemcomitans 同时存在时,可能进一步促进临床附着丧失。
A.actinomycetemcomitans与F.alocis的相互作用
编辑
doi: 10.3389/froh.2022.981343.
这说明两种细菌可能通过不同但互补的毒力作用,共同推动牙周组织破坏。
▸ 可能存在“先协同、后替代”的动态变化
值得注意的是,A. actinomycetemcomitans 在临床附着丧失较轻的患者中更常见,而随着附着丧失加重,其检出率逐渐下降。相反,F. alocis 可能在更深的牙周袋中逐渐占据优势,并在一定程度上“竞争性替代”A. actinomycetemcomitans。
注:临床附着丧失(clinical attachment loss,CAL)是牙周检查中的重要指标,指牙周支持组织被破坏后,牙龈附着位置相对于牙骨质—釉质界(CEJ)发生的丧失程度,通常以毫米(mm)计。
因此,两者的关系可能不是始终稳定的共存,而是具有疾病阶段特征:
疾病早期或局部病变阶段:二者共同出现,可能协同启动炎症和骨组织破坏;
牙周袋加深后:F. alocis 更适应深部、缺氧且氧化应激增强的环境,逐渐占据优势;
疾病持续进展阶段:即使A.actinomycetemcomitans 数量减少,F.alocis 仍可能维持炎症和组织破坏。
F. nucleatum可能促进F. alocis生长
研究发现,F. nucleatum可能作为桥接菌,促进不同细菌进入成熟生物膜;F. alocis 更倾向于在富含 F. nucleatum 的微环境中积累。但在存在 Streptococcus gordonii 时,这种协同作用可能被抵消。
与Streptococcus gordonii的拮抗
Streptococcus gordonii 与 F. alocis 之间通常表现为拮抗:
这提示牙周炎可能伴随由链球菌优势菌群向厌氧蛋白分解菌优势菌群的生态转变。
与其他牙周菌
F. alocis 常与下列菌共同出现:
因此,疾病中的关键可能不是某一个菌的绝对数量,而是由 F. alocis 参与构成的致病性菌群网络。
与人体细胞和免疫系统的相互作用
① 侵入牙龈上皮细胞并诱导炎症
编辑
研究发现,Filifactor alocis 与牙龈上皮细胞主要存在以下相互作用:
总体而言,F. alocis 既能与牙龈上皮细胞结合,可能进入细胞,又能诱导炎症和细胞凋亡,从而削弱牙龈上皮屏障、加重局部炎症,并可能参与牙周组织破坏。不过,相关机制仍需进一步研究。
② F. alocis可影响人类中性粒细胞的功能寿命
编辑
影响因子:3.418
Filifactor alocis 与中性粒细胞的相互作用主要表现为:
编辑
简单来说,F. alocis 并不是单纯逃避免疫清除,而是让中性粒细胞“活得更久、保持炎症功能更久”,最终可能导致炎症持续和牙周组织破坏。
③ F.alocis可削弱TNF-α诱导的p38 MAPK通路
编辑
影响因子:5.085
同时又有研究发现,Filifactor alocis 会“重编程”中性粒细胞的功能。活的 F. alocis 可削弱 TNF-α 诱导的 p38 MAPK 通路,进而减少部分炎症因子的产生。
这种调控可能帮助 F. alocis 逃避免疫清除,同时维持局部炎症,促进牙周炎持续发展。
③ 影响牙龈成纤维细胞
F. alocis 的PrtFAC等蛋白酶可:
此外,它可刺激牙龈成纤维细胞和单核细胞产生MMP-1。MMP-1升高会促进:
当与牙龈卟啉单胞菌等细菌共同存在时,可能进一步增强牙龈成纤维细胞的炎症反应和组织破坏反应。
龈沟产线菌(Filifactor alocis)并不是传统“红色复合体”成员,但目前的研究证据表明,它可能是参与牙周炎病程的辅助病原体、病原共生菌或生态失调促进者。
▸ 牙周炎中Fa的丰度和检出率变化
▸ 健康部位较少,牙周病变部位明显增加
多数研究显示,Fa在健康牙龈沟中检出较少,而在以下部位明显增加:
这说明龈沟产线菌(Filifactor alocis)与牙周袋的低氧、炎症和菌群失调环境具有较强适应性。
▸ 与牙周炎和附着丧失相关
编辑
2025年一项针对3期和4期牙周炎的研究显示:
114份龈下生物膜样本中,龈沟产线菌(Filifactor alocis)阳性率为 78.9%,Fa约占总细菌负荷的 6.3%。
4期牙周炎中Fa丰度明显高于3期,接近后者的两倍;探诊深度(PPD)大于6 mm的牙周袋中,Fa比例明显高于较浅部位;临床附着丧失(CAL)≥5 mm的部位Fa负荷更高;PPD每增加一个单位,Fa浓度约增加23.9%;CAL每增加一个单位,Fa浓度约增加14.9%。
这些结果表明,Fa水平总体上随牙周组织破坏加重而升高。需要注意的是,以上数据来自特定人群和研究设计,不能直接代表所有患者。
▸ 在侵袭性、难治性和重度牙周炎中更常见
早期研究报道,Fa在广泛型侵袭性牙周炎和慢性牙周炎患者中的检出率分别约为77.8%和76.7%,而在牙周健康者中较低。
在一些牙周状况恶化的部位,Fa的发生率甚至高于部分传统牙周病原菌。非手术牙周治疗后,Fa数量通常随临床指标改善而下降,因此,Fa可能具有作为活动性疾病、牙周组织破坏及牙周治疗反应监测标志物的潜在价值。
▸ F. alocis促进牙周炎的主要机制
龈沟产线菌(Filifactor alocis)对牙周炎的影响可概括为:促进失调性生物膜形成,增强氧化应激适应和免疫逃逸,扰乱中性粒细胞与单核/巨噬细胞功能,并通过炎症因子、MMP和RANKL等通路促进软组织破坏和牙槽骨吸收。
▸ 多菌种协同生物膜并促进菌群失调
Filifactor alocis可参与牙周袋内复杂的多菌种生物膜,并与牙龈卟啉单胞菌、伴放线聚集杆菌等形成共现或协同关系,增强生物膜形成、细菌定植与侵袭,并提高Pg在氧化应激下的存活能力。
以Fa为中心的共现菌群还包括P. endodontalis、T. forsythia、E. nodatum及部分Fretibacterium、Lachnospiraceae和Peptostreptococcaceae成员,且在龈下菌斑中更为丰富。由此可见,Fa更可能是牙周病原菌网络中的重要协同节点,而非单独发挥作用。
▸ 影响牙周生态环境
Filifactor alocis还可改变口腔菌群组成,减少与稳态相关的细菌,并增加与牙周炎相关的菌群。2025年动物研究表明,Fa即使在低丰度定植,也能明显改变口腔微生物群。
▸ 破坏牙龈上皮屏障并促进细菌侵入
Fa能够黏附并侵入牙龈上皮细胞。与Pg共同感染时,这种作用更明显。其结果可能包括:
-牙龈上皮屏障完整性下降;
-细菌进入上皮下组织;
-上皮细胞释放IL-1β、IL-6、TNF-α和IL-8;
–中性粒细胞及其他免疫细胞持续募集;
–牙周袋炎症进一步加重。
Fa的胶原酶和其他蛋白酶还可以作用于口腔角质形成细胞,诱导与组织屏障破坏相关的细胞死亡。
▸ 促进RANKL相关骨吸收
Filifactor alocis可通过炎症因子、RANKL/OPG失衡和MMP-9增加,促进破骨细胞生成及牙槽骨吸收。
更重要的是,Fa诱导的炎症和骨丧失依赖TLR2信号和完整的口腔共生菌群。这说明Fa的致病性不是简单的细菌数量效应,而是依赖其与宿主受体和其他口腔细菌的共同作用。
▸ 抑制成骨和骨修复
Fa释放的细胞外囊泡可通过TLR2抑制成骨过程,并在动物模型中诱导全身性骨吸收。由此,Fa可能同时:
-促进破骨;
-抑制成骨;
-延缓牙周组织修复;
-加重牙槽骨结构破坏。
▸ F.alocis作为牙周炎生物标志物的潜力
因此,龈沟产线菌(Filifactor alocis)具有一定的诊断和预后价值:
但Fa检测不能替代:
因此,Filifactor alocis更适合作为辅助诊断、严重度评估和疗效监测指标。
▸ F.alocis可能相关的其他口腔疾病
① 种植体周围炎
龈沟产线菌(Filifactor alocis)可存在于种植体周围炎病变的种植体沟和龈下生物膜中,并适应其中低氧、富含蛋白质和氨基酸的环境以及厌氧多菌种生物膜。
它可能参与:
目前主要证据来自检出和相关性研究,尚不能证明Filifactor alocis是种植体周围炎的独立首要病原菌。
② 根管感染和根尖周炎
Filifactor alocis已在以下情况中被检测到:
其严格厌氧、无糖发酵和蛋白质利用能力,使其适合在根管深部的低氧、营养受限环境中生存。
③ 牙周-牙髓联合病变
Filifactor alocis同时可存在于深牙周袋和感染根管中,因此可能参与牙周-牙髓联合感染,但目前证据主要是共检出和相关性。
④ 侵袭性或快速进展型牙周炎
Filifactor alocis在侵袭性牙周炎和快速附着丧失部位中较常见。部分纵向研究发现,Filifactor alocis可与Aa、S. parasanguinis组成菌群组合,并在骨丧失出现前出现。
这提示Filifactor alocis可能参与疾病发生早期,但目前更谨慎的表述是:Fa是快速进展型牙周炎的风险相关菌或协同病原体。
⑤ 口腔鳞状细胞癌等疾病
有研究在部分口腔黏膜病变及肿瘤相关菌群中检出Filifactor alocis,包括口腔鳞状细胞癌(OSCC)相关菌群。理论上,Fa引起的长期炎症、氧化应激、免疫调节和组织损伤,可能通过持续改变口腔微环境,间接影响肿瘤发生发展。
总体而言,Filifactor alocis是一种与牙周炎严重程度密切相关的新兴、协同型牙周病原体。其丰度通常在牙周炎病变、深牙周袋、临床附着丧失明显及部分糖尿病患者中升高。
龈沟产线菌(Filifactor alocis)不仅可能参与牙周组织破坏,还可能借助菌血症、炎症介质和免疫失调,将局部牙周生态失衡的影响延伸至口腔外。
但需要强调的是:目前关于Filifactor alocis与口腔外疾病的证据,主要来自动物实验、体外研究、病例报告和横断面微生物组研究。
1
类风湿关节炎 ↑↑↑
编辑
影响因子:4.152
▸ 早发类风湿关节炎患者口腔中F. alocis升高
在一项通过口腔微生物群识别早发性类风湿性关节炎(eRA)患者的研究中发现,患者唾液中的Filifactor alocis丰度高于健康对照。
即使排除明显牙周袋加深者,eRA患者仍表现出不同的口腔微生物组成及较高Fa水平。Fa与Prevotella pleuritidis、Treponema denticola和Porphyromonas endodontalis等菌共同构成与eRA相关的微生物特征。这些结果提示,Fa可能作为早期RA相关口腔微生态改变的候选标志菌。
▸ 可能的作用机制
诱导持续性全身炎症:Filifactor alocis可刺激牙龈上皮细胞、单核细胞和巨噬细胞产生IL-1β、IL-6、TNF-α、IL-8、COX-2及MMP-1等炎症和组织降解相关分子。这些因子可能进入循环,扩大系统性炎症反应,并影响RA易感个体的免疫平衡。
影响中性粒细胞功能:Fa可通过TLR2等途径:增强中性粒细胞趋化;诱导部分脱颗粒;抑制氧化爆发;延迟吞噬体成熟;抑制NETs形成;延长中性粒细胞的功能寿命。结果可能是:细菌未被有效清除,但中性粒细胞持续释放炎症介质和组织损伤分子,从而形成“清除不足—炎症持续—组织损伤”的状态。
可能参与自身免疫启动,但证据仍有限:部分早期研究推测,Fa具有精氨酸代谢和精氨酸脱亚胺相关潜能,理论上可能影响蛋白质瓜氨酸化,从而与抗瓜氨酸化蛋白抗体(ACPA)形成有关。
•小结:龈沟产线菌(Filifactor alocis)更可能是早发类风湿关节炎患者相关口腔微生态失调和慢性炎症网络中的一个参与者,而不是独立致病菌。其作用可能依赖于宿主遗传易感性、牙周炎、吸烟以及与其他病原菌的协同作用。
2
全身性骨丢失和骨代谢异常 ↑↑↑
编辑
影响因子:14.976
这是目前龈沟产线菌(Filifactor alocis)口腔外作用中机制证据相对明确的方向之一。研究显示,Filifactor alocis的胞外囊泡(EVs)可由局部感染或外源方式进入循环,并在远处骨组织中产生影响。
▸ F.alocis胞外囊泡激活破骨细胞形成
Fa来源的胞外囊泡(EVs)含有脂蛋白等免疫刺激成分,可通过TLR2激活骨髓来源的破骨细胞前体,促进破骨细胞分化和活性增强,进而加剧骨吸收及全身性骨丢失。
编辑
doi: 10.3389/froh.2022.981343.
此外,Fa EVs还可通过TLR2信号抑制骨源性间充质基质细胞向成骨细胞分化,降低骨矿化水平并下调成骨相关基因表达,同时提高RANKL/OPG比值。RANKL/OPG比值升高可进一步促进破骨细胞形成,使骨形成减少、骨吸收增加。
3
远处器官感染与急性肾损伤
▸ Filifactor alocis感染可导致肾损伤
小鼠感染模型显示,Filifactor alocis可从局部感染灶播散至:脾脏、肝脏、肺、肾脏。这些器官可出现短暂性细菌检出和炎症细胞浸润,其中肾脏可见上皮损伤。后续口服感染模型还提示,牙周感染可能引起急性肾损伤相关表现。
但动物模型中的器官播散并不等同于人类慢性器官感染。目前在人类远处病灶中检出的Filifactor alocis,部分依赖16S rRNA测序,仍缺乏从多数病灶中培养出活菌的证据。因此,Filifactor alocis更可能被认为是潜在的炎症或感染参与者,而非已证实的常见器官致病菌。
4
银屑病患者 ↓↓↓
编辑
▸ 银屑病患者口腔中F. alocis相对健康人减少
一项研究比较了银屑病患者、牙周炎患者和口腔健康对照者的唾液微生物组组成。
该研究显示,银屑病患者唾液中 Filifactor alocis 的相对丰度为0.0124%,检出率为15.4%(4/27),低于牙周炎患者的0.1357%和63.8%(37/58),也略低于口腔健康对照的0.0153%和21.2%(11/52)。
5
牙周炎伴良性前列腺增生 ↑↑↑
编辑
影响因子:5.465
▸ F. alocis与前列腺症状评分和体积呈正相关
还有一项研究发现,龈沟产线菌(Filifactor alocis)在同时患有良性前列腺增生(BPH)和牙周炎的患者中显著增加,且其丰度与前列腺症状评分(IPSS)和前列腺体积呈正相关。
因此,Filifactor alocis可能与良性前列腺增生进展有关,但这种关联可能受到牙周炎的影响,尚不能证明因果关系。
6
糖尿病牙周炎患者 ↑↑↑
▸ 糖尿病牙周炎患者中F. alocis进一步升高
编辑
关于F. alocis与糖尿病的关系,目前主要表现为以下趋势:
•在糖尿病合并牙周炎患者中,F. alocis通常比无糖尿病的牙周炎患者更丰富;
•F. alocis在糖尿病患者的龈下微生物群中可能成为优势或高频菌;
•F. alocis丰度与血糖控制水平呈一定相关性:血糖控制较差者往往更容易检出或具有更高Fa水平;
•F. alocis丰度还与牙周袋深度增加和临床附着丧失相关。
龈沟产线菌(Filifactor alocis)本身具有较强的氧化应激抵抗能力,因此可能更容易在糖尿病患者的牙周袋中定植和持续存在。
7
脑脓肿、胸腔积脓等
▸ 脑脓肿
病例报告通过16S rRNA测序在脑脓肿样本中检出Filifactor alocis,提示其可能通过牙源性感染播散、菌血症、与其他厌氧菌共感染,或在免疫功能受损时发生机会性感染,参与脑脓肿形成。
▸ 胸腔积脓
还有研究在混合厌氧性胸腔积脓的胸腔积液中检出Filifactor alocis。
▸ 其他感染部位
个案报道还在深颈部脓肿、面部或颌面部感染中检出Filifactor alocis;此外,有研究在肺癌患者的支气管肺泡灌洗液中发现。
健康牙周位点中龈沟产线菌(Filifactor alocis)通常含量较低,而在慢性牙周炎、出血明显和炎症活跃的龈下生物膜中,其检出率及相对丰度明显升高,并与临床附着丧失及治疗反应不佳的相关,提示其可能可以作为识别牙周炎等牙周病的标志物和干预的靶标。
龈沟产线菌可被视为牙周炎生态失调中的重要协同节点,而非能够脱离宿主和菌群背景被单独定义的“唯一病原体”。在致病过程中,龈沟产线菌通常不是单独发挥作用,而是与牙龈卟啉单胞菌、具核梭杆菌、齿垢密螺旋体及其他牙周相关菌共同参与多菌种生物膜形成。菌间协同可增强细菌黏附、定植、上皮侵袭和持续感染能力;与此同时,龈沟产线菌还可能诱导牙龈上皮细胞及免疫细胞释放促炎因子,影响中性粒细胞功能,并参与细胞外基质降解、炎症维持和破骨细胞活化。
因此,龈沟产线菌可能是连接龈下微生态失调、宿主免疫异常与牙周组织破坏的重要功能节点。糖尿病、吸烟、妊娠等因素造成的代谢或免疫改变,也可能进一步影响其定植和扩增。
从干预角度看,龈沟产线菌(F. alocis)可利用蛋白质、多肽和氨基酸等营养物,因此应注意减少口腔内、特别是牙缝和龈沟附近滞留的食物蛋白残渣,如肉丝、肉纤维、奶制品和蛋类残留等。餐后可及时漱口,食用纤维较多的肉类后更应使用牙线、牙缝刷或冲牙器清洁后牙邻面及牙龈边缘,避免残渣长时间滞留并被菌斑利用。
但需要指出,牙周袋内该菌更重要的营养来源往往是炎症时增加的龈沟液、组织渗出物、唾液糖蛋白及宿主蛋白降解产物。因此,预防重点仍是彻底控制牙菌斑和牙龈炎症:每日早晚刷牙、清洁牙缝、定期洁牙;如有刷牙出血、口臭、牙周袋或牙齿松动,应及时接受牙周检查和龈下清洁。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Aja E, Mangar M, Fletcher HM, Mishra A. Filifactor alocis: Recent Insights and Advances. J Dent Res. 2021 Jul;100(8):790-797.
Aruni W, Chioma O, Fletcher HM. Filifactor alocis: The Newly Discovered Kid on the Block with Special Talents. J Dent Res. 2014 Aug;93(8):725-32.
Aruni AW, Mishra A, Dou Y, Chioma O, Hamilton BN, Fletcher HM. Filifactor alocis–a new emerging periodontal pathogen. Microbes Infect. 2015 Jul;17(7):517-30.
Kim HY, Song MK, Gho YS, Kim HH, Choi BK. Extracellular vesicles derived from the periodontal pathogen Filifactor alocis induce systemic bone loss through Toll-like receptor 2. J Extracell Vesicles. 2021 Oct;10(12):e12157.
Moffatt CE, Whitmore SE, Griffen AL, Leys EJ, Lamont RJ. Filifactor alocis interactions with gingival epithelial cells. Mol Oral Microbiol. 2011 Dec;26(6):365-73.
Romero-Martínez R, Maher A, Àlvarez G, Figueiredo R, León R, Arredondo A. Whole Genome Sequencing and Phenotypic Analysis of Antibiotic Resistance in Filifactor alocis Isolates. Antibiotics (Basel). 2023 Jun 15;12(6):1059.
Esberg A, Johansson L, Johansson I, Dahlqvist SR. Oral Microbiota Identifies Patients in Early Onset Rheumatoid Arthritis. Microorganisms. 2021 Aug 3;9(8):1657.
Miralda I, Vashishta A, Rogers MN, Lamont RJ, Uriarte SM. The emerging oral pathogen, Filifactor alocis, extends the functional lifespan of human neutrophils. Mol Microbiol. 2022 Jun;117(6):1340-1351.
Aruni AW, Roy F, Fletcher HM. Filifactor alocis has virulence attributes that can enhance its persistence under oxidative stress conditions and mediate invasion of epithelial cells by porphyromonas gingivalis. Infect Immun. 2011 Oct;79(10):3872-86.
Spooner R, Weigel KM, Harrison PL, Lee K, Cangelosi GA, Yilmaz Ö. In Situ Anabolic Activity of Periodontal Pathogens Porphyromonas gingivalis and Filifactor alocis in Chronic Periodontitis. Sci Rep. 2016 Sep 19;6:33638.
Razooqi Z, Khzam N, L’Hostis M, Belibasakis GN, Johansson A, Oscarsson J. Prevalence of the oral pathogen Filifactor alocis and its FtxA toxin related to clinical parameters and presence of Aggregatibacter actinomycetemcomitans. Front Cell Infect Microbiol. 2025 Jan 22;14:1501028.
谷禾健康
古人说“小暑大暑,上蒸下煮”。从小暑这一天开始,暑气渐盛,湿热交蒸。冷饮、水果、夜宵、烧烤多了,出汗变多,胃口时好时坏,肠胃也更容易在这个季节变得敏感。
二十四节气记录着气候变化,实际上也记录着人们的生活节律。春天吃新鲜蔬菜和春芽,夏天吃瓜果冷饮,秋天讲润燥,冬天重温补和热食。季节变了,餐桌变了,身体内部的生态环境也会随之变化。
肠道菌群正是最容易受到影响的系统之一。它会随着饮食、作息、温度和生活方式的变化不断波动,而这些因素本身又具有明显的季节性。那么,肠道菌群是否也存在自己的季节节律?
谷禾基于2024年1月~2026年5月期间14.6 万余份有明确取样时间的中国人群肠道菌群检测样本,系统观察了菌群在不同月份、季节和人群中的变化。结果显示,肠道菌群确实存在广泛的季节性波动。乳酸菌、双歧杆菌、拟杆菌、普雷沃氏菌以及多种产丁酸菌,都呈现出与月份或季节相关的变化特征。
饮食是目前观察到的最稳定、最主要的季节性驱动因素。年龄分层分析进一步显示,在婴幼儿和儿童人群中,这种季节性信号更加值得关注。这一发现提示,在生命早期肠道菌群建立阶段,饮食结构、环境温度和季节性暴露可能共同参与塑造肠道微生态。
本文将详细呈现谷禾的这项观察研究中,不同季节中代表性菌属的变化特征,分析饮食、温度、生活方式和年龄差异可能发挥的作用,并讨论季节因素对菌群检测、报告解读、干预评估和长期随访的启示。
理解菌群的季节性变化,不是为了给每个季节贴上固定的“好坏”标签,而是把菌群数据放回其发生的时间与生活情境中,也借由二十四节气和饮食取象的传统视角,重新看见季节如何经过餐桌,进入人体内部的微生态。
过去几年,肠道菌群已经从一个专业研究领域,逐渐进入大众健康管理视野。很多人知道,肠道菌群与消化、代谢、免疫、炎症、情绪、营养吸收等多个方向有关;也有越来越多人开始接受肠道菌群检测,希望通过检测了解自己的肠道生态状态。
然而,在实际的菌群检测和健康管理场景中,人们往往容易把一次检测结果理解为个体长期稳定的菌群状态。例如,某些菌属偏高、某些菌属偏低,常常被直接解释为“好”或“不好”。但从生态学角度看,肠道菌群并不是静止的,它更像一个不断响应外界环境和宿主状态变化的动态系统。
影响菌群波动的因素包括饮食结构、药物使用、年龄、疾病状态、睡眠、运动、压力、地域环境、气候条件、生活方式等。
其中,季节是一个容易被忽略但非常重要的综合性变量。
季节并不是单一因素。
当我们说“春季”“夏季”“秋季”“冬季”时,背后同时包含了很多变化:气温、湿度、日照、食材供应、饮食偏好、活动量、睡眠节律、感染流行、节假日饮食、社交聚餐,以及不同地区生活方式的变化等。
它更像一个综合性的时间背景,把饮食、环境和行为变化叠加在一起,最终在人群层面表现为肠道菌群的波动。
这也是理解肠道菌群时容易被忽略的一点:菌群检测不是给人贴上一个永久标签,而是在某个时间点记录人体内部微生态的一个切面。
季节,正是观察这种动态变化的重要时间维度之一。
饮食,是连接季节和菌群的关键路径
在所有季节相关因素中,饮食是最直接的一条路径。
肠道菌群依赖进入肠道的营养底物生存和竞争。膳食纤维、抗性淀粉、蛋白质、脂肪、多酚、乳制品、发酵食品以及其他复杂食物成分,都会影响不同菌群的生长环境。
而季节,往往会改变人的餐桌。春夏秋冬,不只是天气不同,食物种类、烹调方式、食欲偏好、进餐节律也都不完全一样。即使在现代供应链高度发达的今天,人们的饮食仍然保留着明显的季节特征。
这意味着,季节可能通过改变饮食结构,进一步改变肠道菌群所处的生态环境。
编辑
当然,这并不是说某一种食物会直接决定某一个菌属。真实世界中的饮食变化往往是整体性的:人们不是只多吃一种食物,而是整套餐桌结构、烹调方式和生活状态都在变化。
肠道菌群响应的,也不是某个孤立食物,而是整体饮食模式带来的生态底物变化。
所以,从季节重新理解肠道菌群,本质上也是从饮食节律重新理解肠道菌群。
忽略采样季节,可能影响菌群检测解读
如果肠道菌群存在季节相关波动,那么采样季节就不应被忽略。
这对菌群检测非常关键。如果不记录采样季节,只看某个菌属高低,就容易把自然波动误解为异常,也可能把季节背景带来的变化误认为疾病、产品或干预效果。
因此,肠道菌群检测需要从“静态参考值”走向“动态解读”。一次检测结果,要结合采样时间、近期饮食、药物使用、感染状态、年龄阶段和生活方式共同判断。只有这样,才能避免把一个时间点的生态快照,误读为长期固定状态。
但要判断这种时间波动究竟只是少数人的个体现象,还是能够在人群层面形成稳定规律,仅凭少量样本远远不够。我们需要一个跨越多个季节、覆盖足够多人群的真实世界窗口。
为什么研究季节性,需要足够大的样本?
研究肠道菌群的季节变化,并不是简单把样本分成春、夏、秋、冬四组,然后比较哪个菌高、哪个菌低。因为肠道菌群的个体差异太大。
不同人的饮食习惯、年龄阶段、地域环境、疾病状态、用药情况和生活方式都不一样。很多时候,人与人之间的差异,可能远远大于季节本身带来的变化。
如果样本量太小,季节信号很容易被个体差异掩盖。
比如,有的人长期高纤维饮食,有的人偏高脂高蛋白饮食;有的人近期使用过抗生素,有的人刚经历腹泻或感染;有的人生活在南方湿热地区,有的人生活在北方寒冷地区。这些因素都会影响肠道菌群。
在这种背景下,要观察“季节”这个相对温和、复合、长期的变量,就需要足够大的样本规模。
编辑
来自谷禾健康数据库的真实世界样本
本次分析基于谷禾健康有明确取样时间的 146,539 份中国人群肠道菌群检测样本,样本时间覆盖 2024年1月~ 2026年5月。
这组数据覆盖多个季节周期,不是某一个短期实验,也不是某一个季节的截面观察,而是来自真实生活场景的大规模检测数据。
真实世界数据真实世界数据有一个重要特点:它不“干净”,但足够真实。
它不像严格实验研究那样,把饮食、作息、环境和采样条件全部统一起来。相反,它保留了真实生活中的复杂性:不同的年龄、地域、饮食习惯、健康状态、生活方式、采样时间等。
这种复杂性会增加分析难度,但也让数据更接近日常健康管理中的真实人群状态。
因为真实的人,本来就不是生活在完全控制的实验环境里。
因此,这组数据的意义不止在于样本量大,更在于它提供了一个观察中国人群肠道菌群季节性变化的真实窗口,14万多份样本有机会呈现出更大尺度上的时间规律。
3岁以上人群菌群tSNE分布和季节分布
编辑
<图源:谷禾肠道菌群检测分析数据库>
3岁以下人群菌群tSNE分布和季节分布
编辑
<图源:谷禾肠道菌群检测分析数据库>
谷禾分析纳入多类变量,避免把季节差异简单归因
观察肠道菌群的季节性,不能只停留在“春天高一点、冬天低一点”的层面。
前面我们了解到,季节本身不是一个单一因素。春夏秋冬背后,包含很多因素,一个菌属在某个季节升高,并不意味着这个季节本身直接导致它升高。
为回答这些问题,谷禾健康在分析中纳入了年龄、性别、地域、饮食、生活方式、温度等多类因素,并通过多层驱动模型,评估不同因素在菌群季节性变化中的相对作用。
也就是说,这项分析并不是把样本粗略分成春夏秋冬后做简单比较,而是在真实世界的复杂变量中,进一步识别肠道菌群季节性变化背后的可能来源,也让后续关于饮食、温度、生活方式和年龄差异的讨论更有依据。
那么在这项观察研究中,当春夏秋冬依次展开,中国人群层面肠道菌群究竟呈现出哪些可观察的变化?哪些菌属更容易表现出季节差异?这些变化又可能指向怎样的肠道微生态节律?
下一章节,我们来详细了解。
▶ 研究分析方法
★ 研究设计与数据来源
本研究为回顾性观察性研究。
纳入标准:
– 检测时间:2024年1月1日~2026年5月15日
– 样本类型:粪便样本
– 检测方法:统一的16S rRNA基因流程
– 数据质量:通过质控标准(测序深度>100,000 reads,Q30>90%)
★ 研究人群
总样本量:146,539份
人口统计学特征如下:
编辑
<图源:谷禾肠道菌群检测分析数据库>
★ 实验分析流程
编辑
▶ 研究结果
在人群层面,多个核心菌属随月份和季节呈现出不同程度的波动。部分菌属在春季达到相对高峰,部分菌属在夏季或秋季更突出,也有一些菌属在冬季表现出升高趋势。
这说明,季节影响的可能不是“某一个菌多一点或少一点”,而是整个肠道微生态系统的功能倾向。
SPRING
春季
| 产丁酸相关菌属和双歧杆菌表现突出
在四季变化中,春季是一个非常值得关注的窗口。
产丁酸菌升高 ↑↑↑
谷禾数据显示,多个与膳食纤维发酵、短链脂肪酸产生和肠道共生稳态相关的菌属,在春季表现出相对高峰。
Faecalibacterium 在春季达到高峰,春季相较冬季约升高 35.1%。
3岁以下人群
编辑
<图源:谷禾肠道菌群检测分析数据库>
3岁以上人群
编辑
<图源:谷禾肠道菌群检测分析数据库>
Roseburia也在春季达到高峰,约升高 6.7%;
Eubacterium春季相较冬季约升高 18.7%。
编辑
<图源:谷禾肠道菌群检测分析数据库>
这些菌属常被认为是与产丁酸菌或短链脂肪酸相关菌群。短链脂肪酸,尤其是丁酸,与肠道屏障、上皮能量供应和免疫稳态等方向密切相关。
这并不意味着春季直接提高了这些菌属,也不能简单写成春季菌群一定更好。应该说在春季这一时间窗口中,饮食结构、植物性食物摄入、活动状态和整体生活节律的变化,可能共同为这些菌属提供了更有利的生态背景。
双歧杆菌较高 ↑↑↑
除了产丁酸相关菌属,双歧杆菌(Bifidobacterium)也在春季表现较高,春季相较秋季约升高15.0%。
双歧杆菌是人体肠道重要的核心菌属和有益共生菌,能够利用多种碳水化合物底物进行发酵,并产生乳酸、乙酸等有机酸,其丰度受益生元摄入、发酵食品、膳食多样性、运动、睡眠、抗生素使用及炎症状态等因素影响。
春季新鲜蔬菜、水果、豆类、全谷物及富含可溶性纤维和抗性淀粉食物的摄入可能增加,为双歧杆菌提供更多可利用底物,从而促进其相对丰度升高。此外,春季户外活动增加、睡眠节律改善以及冬季感染和抗生素暴露后的菌群恢复,也可能为双歧杆菌重新占据有利生态位创造条件。
需要指出的是,本研究观察到的是季节相关性,而非直接因果关系;季节效应可能同时受到饮食、抗生素使用、生活方式、样本采集时间及个体基础差异等因素影响。下同。
双歧杆菌在春季的升高,提示部分有益共生菌属也存在季节相关波动。
春季这一组结果,可以理解为肠道微生态中“共生菌群活跃度”的一个观察窗口。它提示我们,季节性饮食和生活背景可能会影响肠道菌群的基础生态状态。
编辑
SUMMER
夏季
| 乳杆菌升高,夏季饮食背景值得关注
谷禾数据显示,全人群中 乳杆菌(Lactobacillus)从春季到夏季出现跃升,夏季相较春季约升高 18.8%。
结合乳杆菌的生态和代谢特征,这一现象可能与夏季相关的饮食和生活方式改变有关。乳杆菌能够利用碳水化合物进行发酵并产生乳酸,且其丰度受膳食结构、益生元摄入、发酵食品摄入、药物使用及宿主微生态环境影响。
夏季水果、蔬菜、发酵乳制品及其他可发酵底物摄入增加,可能为乳杆菌提供更有利的营养生态位,从而促进其相对丰度升高。此外,夏季户外活动、饮水量、日照暴露及机体免疫代谢状态的变化,也可能通过影响肠道屏障、炎症水平和菌群竞争关系间接改变乳杆菌丰度。
乳杆菌属Lactobacillus——维持肠道和阴道健康不可忽缺的角色
部分优势菌属也出现轻度季节差异
拟杆菌属(Bacteroides)在夏季也略高,升高幅度约为 3.5%。
拟杆菌属是肠道中常见的优势菌属之一,与多种营养底物利用和肠道代谢过程有关。它在夏季的轻度升高提示,夏季肠道菌群变化并不只发生在 乳杆菌这类大众熟悉的益生相关菌属中,也可能涉及更广泛的肠道优势菌群。
夏季这一组结果提醒我们,菌群变化不能只用“好菌增加”或“坏菌减少”来概括。尤其是乳杆菌这类容易被大众熟悉的菌属,更需要避免过度简化。
它的升高可以提示夏季肠道微生态环境发生了变化,但这种变化究竟意味着什么,还需要结合整体菌群结构、饮食背景、年龄、健康状态和近期生活方式共同判断。
编辑
AUTUMN
秋季
| 部分发酵和代谢相关菌属达到高峰
Phascolarctobacterium 升高 ↑↑↑
数据显示,Phascolarctobacterium 在秋季达到高峰,约升高 29.0%。
这个菌属可能不如双歧杆菌、乳杆菌熟悉。它与肠道发酵、碳水化合物利用和代谢背景有关,能够反映部分肠道菌群对饮食底物变化的响应。
巨单胞菌属升高 ↑↑↑
谷禾数据显示,巨单胞菌属(Megamonas) 也在秋季达到高峰,约升高 27.2%。
巨单胞菌属是肠道内常见的专性厌氧菌,具有亲糖和碳水化合物发酵特征,可利用多种糖类底物并产生乙酸、丙酸和乳酸等代谢产物。
秋季谷物、豆类、玉米、薯类及其他富含抗性淀粉和膳食纤维食物的摄入可能增加,中秋、国庆等节假日也可能带来糕点、肉类、酒精、聚餐和高能量饮食增加和作息扰动,这些变化都会改变进入肠道的营养底物,为巨单胞菌属提供了更丰富的发酵底物,从而促进其相对丰度升高。
已有资料也提示,豆类消费频率、玉米和马铃薯来源的抗性淀粉以及燕麦阿拉伯木聚糖等均可能与巨单胞菌属丰度增加有关。因此,秋季巨单胞菌属升高更可能反映季节性饮食结构改变下碳水化合物发酵相关菌群的生态响应,而不宜简单归因于外界气温变化。
肠道核心菌属——巨单胞菌属(Megamonas),不同人群差异大
注:需要注意的是,巨单胞菌属与宿主健康之间的关系具有明显情境依赖性,其在不同人群和疾病状态中的变化方向并不完全一致。
编辑
WINTER
冬季
| 普雷沃氏菌和韦荣球菌属升高
普雷沃氏菌属较高 ↑↑↑
谷禾数据显示,普雷沃氏菌(Prevotella)在冬季较高,冬季相较夏季约升高 11.3%。
普雷沃氏菌属是人体肠道中重要的厌氧菌属,能够参与蛋白质和碳水化合物食物的分解,其中 Prevotella copri 具有丰富的多糖利用位点和碳水化合物代谢酶,可降解多种植物来源复杂多糖,并产生琥珀酸、短链脂肪酸等代谢产物。
冬季饮食通常更偏向热食、主食、谷物、豆类、薯类、根茎类及其他高能量食物,如果这些食物中含有较多可发酵碳水化合物、抗性淀粉或膳食纤维,则可能为普雷沃氏菌属提供更丰富的代谢底物,从而促进其相对丰度升高。
此外,冬季户外活动减少、日照下降、呼吸道感染增加、炎症状态变化及药物暴露等因素,也可能通过影响肠道屏障、免疫状态和菌群竞争关系,间接参与普雷沃氏菌属的季节性波动。
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
需要注意的是,普雷沃氏菌属具有明显的情境依赖性,并不能简单归类为有益菌或有害菌。
因此,本研究中冬季普雷沃氏菌属升高更应被解释为季节相关饮食和宿主微环境变化下的菌群生态响应,而不能直接推断为肠道健康改善。
韦荣球菌属升高 ↑↑↑
谷禾数据显示,韦荣球菌(Veillonella) 在冬季明显升高,冬季相较春季约升高 51.6%。
编辑
<图源:谷禾肠道菌群检测分析数据库>
韦荣氏球菌属是人体口腔、咽部、呼吸道和消化道中的常见厌氧菌,其代谢特征并非直接利用葡萄糖等碳水化合物,而是主要利用乳酸、丙酮酸等有机酸,并产生乙酸和丙酸等代谢产物。
因此,冬季韦荣氏球菌属升高更倾向于不是由碳水化合物直接促进,而是通过产乳酸菌的交叉喂养间接发生。
冬季高能量饮食、甜食、乳制品或发酵食品摄入变化,部分地区肉类、主食、火锅、炖煮类食物增加,可能促进链球菌、乳酸杆菌等产乳酸菌产生更多乳酸,从而为韦荣氏球菌属提供更丰富的代谢底物。
此外,冬季空气干燥、饮水减少、呼吸道感染增加及口腔生物膜结构变化,再加上元旦、春节等节日周期,聚餐、饮酒、熬夜和饮食过量都可能更加常见,可能影响口腔和咽部韦荣球菌属的定植,并通过口腔—肠道迁移参与粪便菌群中该菌属丰度升高。
需要注意的是,韦荣氏球菌属具有明显的情境依赖性,不能简单归类为有益菌。其一方面可将乳酸转化为丙酸,并可能参与运动相关代谢适应;另一方面也与口腔疾病、呼吸道疾病、肝病、炎症反应及菌群失衡有关。
Veillonella denticariosi(龋齿韦荣氏球菌)——一种与儿童早期龋齿相关的细菌
编辑
看到季节差异之后,更重要的问题可能是:
下一章节我们继续探讨。
基于谷禾健康的多因素模型结果,饮食、温度、生活方式、年龄等因素都可能参与肠道菌群的季节性波动。其中,饮食相关信号最突出,是目前模型中观察到的最主要解释因素。
饮食是模型中最强的解释信号
模型结果显示,在当前能够捕捉到的季节性相关信号中,饮食相关变量贡献最高。
全人群中,饮食相关信号约占模型已解释部分的 53.3%;在婴幼儿组中,这一比例更加突出,约可达到 78%。
编辑
<图源:谷禾肠道菌群检测分析数据库>
说明,肠道菌群的季节性变化,很大程度上与季节性饮食变化密切相关。
春天的新鲜蔬菜和嫩芽,夏天的水果、冷饮、烧烤和海鲜,秋天的全谷物、根茎、坚果和菌菇,冬天的火锅、炖菜、红肉、腌菜和节日饮食,都会形成不同的营养底物环境。因此,所谓“季节影响菌群”,很大程度上可能是: 季节改变了我们的饮食,而饮食改变了肠道菌群。
但这个比例并不等于“饮食解释了所有菌群变化”。肠道菌群的个体差异极大,不同人的长期饮食习惯、健康状态、年龄阶段、用药经历和生活方式都会造成影响。模型能够捕捉到的是季节性相关信号中的一部分,而不是全部个体差异。
更准确地说,在目前模型能够解释的季节相关变异中,饮食是最主要的解释因素。
温度:影响菌群变化的背景变量
除了饮食,温度也是季节变化中最直观的因素
春夏秋冬首先带来的,是气温和体感环境的变化。温度升高或降低,可能影响人的食欲、饮水量、活动量、睡眠状态、胃肠动力和整体代谢状态。这些变化不一定直接作用于肠道菌群,但会改变肠道微生态所处的宿主环境。
因此,在谷禾健康的分析中,温度也被纳入模型,用于观察其与菌群季节性波动之间的关系。
不过,温度不能被简单理解成独立原因。
编辑
在真实世界中,温度往往和月份、地域、饮食结构、生活方式同时变化
比如,同样是冬季,北方和南方的气温不同,饮食习惯、室内外活动和生活方式也不同;同样是夏季,高温环境下的人群可能增加冷饮、水果、乳制品摄入,也可能出现作息变化、活动减少或胃肠不适。
这意味着,温度可能是季节性背景中的一个调节因素。它可能通过影响饮食选择、活动状态、肠道功能和宿主代谢,间接参与肠道菌群变化。
也就是说,温度不是这组季节性变化的唯一原因,也不应被放大成核心解释。
在目前的分析中,温度更适合作为辅助变量来理解。它提醒我们,肠道菌群的季节性波动并不只来自餐桌,也来自人体所处的外部环境和生活状态。
如果说饮食是进入肠道微生态最直接的因素,那么温度更像是一个背景条件:它不一定直接塑造菌群,却可能通过改变人的行为和身体状态,参与菌群变化的形成。
因此,在解释季节性菌群波动时,既要看到温度因素,也要避免把它简单化。
地域、城市层级、生活方式:让季节效应更加复杂的变量
肠道菌群的季节性具有地域背景
中国地域广阔,南北方、东西部、沿海与内陆在气候条件、饮食文化、生活方式和城市化程度上存在明显差异。因此,同样是春季或冬季,不同地区人群实际经历的温度、湿度、日照、食材供应和饮食习惯可能并不相同。
同一个季节,在不同地区并不意味着同一种菌群暴露背景。
编辑
城市层级可能影响菌群季节性响应
不同城市层级人群的饮食模式、外食比例、生活节奏、工作压力、运动习惯和健康检测行为可能存在差异。
这些差异都可能影响菌群组成及其季节波动。
城市层级可能通过饮食现代化、生活节奏、外食比例、健康行为差异,调节肠道菌群的季节性响应。对于后续研究而言,城市层级可以作为一个重要分层变量,但最好进一步结合真实饮食、职业、睡眠、运动和社会经济信息,以提升解释力。
活动、睡眠和日照等日常节律的改变
季节变化往往会带来生活节律的变化。不同季节,人们的户外活动、运动量、睡眠时间、日照暴露、社交频率和节假日行为都可能不同。尤其在夏季和冬季,夜间活动、空调环境、室内停留、聚餐频率、出行方式和作息规律,都可能发生明显变化。
这些因素不一定像饮食那样直接为肠道菌群提供营养底物,但它们会通过宿主状态间接影响肠道微生态。
例如,运动和活动量变化可能影响胃肠动力和能量代谢;睡眠和作息变化可能影响免疫节律和内分泌状态;日照和户外活动变化,也可能通过生活节律和代谢状态间接参与菌群变化。
编辑
节假日、感染和用药带来的短期扰动
生活方式的季节差异,还体现在一些短期事件上。
节假日聚餐常常伴随饮食过量、饮酒、熬夜和作息紊乱;换季时期,感染、腹泻、胃肠道不适和抗生素使用也可能增加。而这些健康事件本身,就会对肠道菌群产生扰动。
这类因素的特点是时间短、影响强、个体差异大。它们未必代表长期菌群状态,却可能显著影响某一次检测结果。
因此,当我们看到某些菌属在特定季节发生变化时,也要看到这个季节人的生活状态发生了什么变化。
生活方式变量很重要,但不容易单独拆开
生活方式的解释需要谨慎。
在真实世界数据中,生活方式往往比饮食和温度更难精确量化。运动、睡眠、压力、聚餐、出行、感染和用药等因素,常常彼此交织,也容易与季节、地域和饮食变化同时出现。
因此,生活方式更适合作为菌群季节性波动的补充解释,而不是单独归因。
这也是真实世界研究的复杂之处。
肠道菌群不是在单一变量中变化的,而是在饮食、温度、生活方式和宿主状态共同构成的生活环境中变化的。生活方式变量让我们看到,季节性菌群波动是人与环境、行为和身体状态共同作用的结果。
年龄:让季节响应出现人群差异
肠道菌群并不是在所有年龄段都同样稳定。成年人菌群相对成熟,虽然仍会受到饮食、药物、疾病和生活方式影响,但整体生态已经形成较强的个体特征。相比之下,婴幼儿和儿童的肠道菌群仍处于建立和成熟过程中,对外界变化更加敏感。
这意味着,同样是季节变化,不同年龄人群的菌群响应并不一定相同。
谷禾模型中也能看到这一点:婴幼儿组的饮食相关信号更加突出,约可达到模型已解释部分的 78%。
关于婴幼儿这一部分,将在下一章展开讨论。
生命早期的菌群,本来就在快速建立中
在所有年龄段中,婴幼儿和儿童是肠道菌群最需要单独讨论的人群。原因很简单:他们的肠道菌群还没有完全稳定。
这个阶段的菌群更容易受到外部因素影响
成年人肠道菌群虽然也会受到饮食、药物、疾病和生活方式影响,但整体结构已经形成较强的个体特征。相比之下,婴幼儿尤其是 3 岁以下儿童,肠道菌群仍处在快速建立和成熟过程中。
出生方式、喂养方式、母乳或配方奶、辅食添加、家庭饮食、感染、腹泻、抗生素使用、益生菌补充、生活环境变化,都可能影响儿童肠道菌群的组成。
因此,季节变化对儿童菌群的影响,不能简单套用成人逻辑。
编辑
儿童菌群的季节性:发育阶段叠加季节变化
对成年人来说,季节可能更多表现为饮食和生活方式背景的变化;对婴幼儿来说,季节变化往往还会叠加菌群发育、辅食变化、感染风险和家庭照护方式变化。
谷禾模型显示:婴幼儿组饮食信号更突出
谷禾模型结果中,一个值得注意的发现是:婴幼儿组的饮食相关信号更强。
在全人群中,饮食相关变量已经是季节性菌群波动中最主要的解释信号;而在婴幼儿组中,这一信号更加突出,约可达到模型已解释部分的 78%。
这说明,在生命早期,饮食变化可能更容易影响肠道菌群的季节性波动。
婴幼儿组饮食信号更突出,与生命早期菌群发育特点相一致
这个结果并不难理解。婴幼儿的饮食结构本来就在快速变化。出生后从母乳或配方奶开始,到逐步添加辅食,再到食物种类不断扩展,每一个阶段都在改变进入肠道的营养底物。
对成年人而言,某个季节多吃一些水果、蔬菜或高能量食物,可能只是饮食结构中的一部分变化。对婴幼儿而言,食物种类的增加、辅食结构的调整、奶类摄入比例的改变,都可能成为影响菌群的重要事件。
当这种发育过程中的饮食变化,再叠加季节性食材变化、家庭饮食习惯和换季时期的生活状态变化,儿童肠道菌群就可能表现出更强的响应。
编辑
这也提示我们:儿童菌群的季节性变化,不能只从“季节”本身理解,更要看孩子当时处于什么发育阶段、正在吃什么、近期饮食是否发生过调整。
感染、腹泻和用药可能比季节影响更直接
除了饮食,儿童菌群还更容易受到短期健康事件影响。
换季时期,儿童更容易出现感染、腹泻、胃肠道不适、食欲波动和用药变化。这些因素对肠道菌群的影响,往往比季节本身更加直接。
如果这些事件发生在某个季节,就容易与季节效应交织在一起。例如:
因此,儿童菌群检测不能只看采样月份。更重要的是看采样前一段时间,孩子是否经历过明显的饮食调整、配方奶或者母乳喂养、是否调整辅食、腹泻、感染、发热、用药(抗生素)、旅行、换环境或作息变化。
这也是儿童菌群解读比成人更复杂的地方。
成人菌群检测更容易反映较长期的饮食和生活方式背景;儿童菌群检测则更容易受到近期事件影响。尤其在 3 岁以下儿童中,这种影响可能更加明显。
儿童检测结果应放在连续过程里解读
儿童菌群仍处于发育过程中,一次检测只能呈现某个时间点的状态。报告中某种菌偏高或偏低,并不一定意味着长期异常,也不能仅凭单次结果判断干预是否有效。
儿童菌群检测更需要动态解读
解读时,应将检测结果与儿童的年龄、发育阶段及此前的生活记录结合,并关注后续变化趋势。
相比追求某个菌属在一次检测中达标,持续观察整体菌群是否随着成长逐渐趋于稳定,更具有参考价值。
编辑
管理重点是减少不必要的干预
儿童肠道菌群会随着生长发育、饮食转换和生活环境不断变化,因此不宜因为某次检测结果或季节性波动,就频繁更换益生菌、补充剂或饮食方案。
日常管理应优先保证与年龄相适应的喂养方式和食物多样性,维持规律作息,并谨慎使用抗生素等可能影响菌群的药物。
出现腹泻、持续腹痛、体重增长异常等情况时,应首先结合临床表现进行评估,判断孩子的菌群变化是否符合年龄阶段,近期饮食是否稳定,是否处在辅食转换期,采样季节是否可能影响结果,而不是只针对报告中的某一种菌直接干预。
对儿童而言,管理目标不是让菌群长期保持不变,而是为其正常发育提供相对稳定的生活和饮食环境。
这也进一步说明,肠道菌群检测未来需要从单点判断走向动态解读。尤其在儿童人群中,看见时间、看见年龄、看见饮食(喂养方式和辅食结构)、生活背景,比单独看某一个菌属更加重要。
儿童只是把这种时间敏感性表现得更加明显。对于所有受检者而言,季节性研究最终都要落到一个现实问题上:我们应该怎样理解一次检测,又该怎样判断一次干预是否真正有效?
谷禾基于146,539份样本的分析表明,肠道菌群会随着饮食、环境、生活方式、身体状态发生变化。季节转换往往伴随着气温、食材供应、活动量、睡眠和生活节奏的调整,因此,季节并不是一个孤立的影响因素,而是多种变化共同出现的时间背景。
研究肠道菌群的季节性,并不是为了给不同季节规定一种固定的菌群模式,而是为了回答一个更实际的问题:当检测结果发生变化时,哪些变化可能来自个人健康状态,哪些可能来自干预,又有哪些可能属于正常的时间波动?
对个人健康管理意味着什么
一次检测应放在具体背景中解读
一次菌群检测反映的是采样当时的肠道生态状态,而不是一个人的永久特征。同一个人在不同时间检测,可能因为近期饮食、作息、身体状况或采样季节不同,得到不完全相同的结果。
因此,报告中的菌属丰度、功能指标和风险提示,首先说明的是当前状态。要判断这种状态属于长期特征、短期扰动还是正常波动,还需要结合以下信息:
第一,采样时间
包括月份、季节、是否处于换季期,以及是否临近节假日或生活节奏明显变化的时期。
第二,近期饮食
包括是否出现聚餐、节食、暴饮暴食、旅行,以及蔬果、全谷物、肉类、乳制品、发酵食品、精制碳水和高脂食物摄入的明显调整。
第三,健康和用药情况
包括感染、发热、腹泻、胃肠不适,以及抗生素、益生菌、益生元和其他可能影响肠道环境的药物或补充剂。
第四,个体特征
包括年龄、生理阶段、基础健康状况和所属人群。不同人群的菌群稳定性不同,适用的参考背景也不完全相同。
第五,检测目的
首次检测主要用于了解当前状态,复测则更适合观察变化方向。两者所回答的问题不同,不能采用同样的判断方式。
这些信息可以帮助确定结果能够解释到什么程度,避免将暂时性波动直接判断为长期异常。菌群报告,也可以从单纯展示静态参考值,逐步走向带有时间和个体背景的动态解读。
健康管理不应围绕单个菌反复调整
肠道菌群本身具有一定的波动性。某个菌属在不同季节出现轻度升降,并不一定意味着疾病,也不需要立即更换饮食方案或不断增加补充产品。
对普通人来说,更重要的是保持长期稳定的生态基础:饮食种类相对丰富,蔬菜水果、全谷物、豆类和优质蛋白搭配合理,减少长期高糖、高脂和高度加工食品,并维持规律的进餐、睡眠和活动节奏。
换季时先不必追求复杂的菌群调理,可以尽量避免饮食突然失控。聚餐、旅行或节假日之后,可以逐步回到简单、规律和多样的基础饮食。
正在接受营养或菌群相关干预的人,应保留基本的时间记录,以便将后续结果与实际生活变化对应起来。管理目标不是让菌群保持完全不变,而是通过稳定的饮食和生活方式,为肠道生态提供持续、适宜的环境。
肠道敏感人群更应关注季节变化
对于一些肠道敏感人群,季节性变化可能更容易被感知。例如:
– 肠易激综合征人群;
– 炎症性肠病缓解期人群;
– 经常腹胀、腹泻或便秘的人;
– 老年人、婴幼儿;
– 长期服药或近期使用抗生素者;
– 正在进行益生菌、益生元或膳食干预的人。
这些人群在季节转换、节假日饮食、气温骤变或感染高发期,可能更容易出现胃肠道症状波动。
建议这类人群记录:
– 饮食日记;
– 排便情况;
– 胃肠症状;
– 睡眠和压力;
– 药物和补充剂使用;
– 采样或症状发生的月份与节气。
这样更有助于识别自己的肠道敏感模式。
对人群监测和检测评估意味着什么
跨季节干预需要区分效果与自然波动
菌群检测常被用于评估益生菌、益生元、膳食调整、体重管理和其他营养干预等。但如果干预前后的检测发生在不同季节,观察到的变化可能同时包含干预作用和自然季节波动。
菌群检测适合用来观察趋势和判断干预方向,但不能仅凭某个菌在干预前后发生变化,就证明某一种产品或方案产生了所有效果。
对菌群产业相关机构和企业而言,主动控制并说明季节背景,是提高真实世界证据可信度的重要环节。
从统一参考值走向动态参照体系
大规模真实世界数据的价值,不只是发现菌群会随季节变化,还在于帮助我们建立更符合真实生活的参照体系。
随着样本持续积累,未来可以进一步形成不同年龄、地区、气候和季节下的参考范围,并通过纵向观察,区分相对稳定的个体特征与暂时性扰动。这样,同一个数值就不再只与统一标准比较,而能被放入更合适的时间和人群背景中理解。
菌群检测由此不再只是一次结果展示,而会逐渐成为观察饮食、生活方式与身体状态长期变化的辅助工具。季节性是构建动态参照体系的重要组成部分,是理解肠道生态的时间维度。
春夏秋冬,节气流转,人的饮食和生活节律随之变化,肠道菌群也会在这种变化中表现出自己的生态节律。
看见这种节律,并不是为了把菌群变化神秘化,而是为了让检测、干预和健康管理更严谨。科学的菌群管理,应该是动态的、连续的、背景化的。
对未来研究意味着什么
研究边界与未来方向
本研究是观察性研究,不能直接证明因果关系
例如,研究观察到某些菌属在春季升高,同时春季饮食结构可能发生变化,但这并不等于直接证明“春季饮食导致该菌升高”。同样,温度、节气、地域、生活方式与菌群变化之间的关系,也需要更多纵向随访、干预研究和机制实验进一步验证。
因此本研究更适合被理解为:发现了肠道菌群季节性变化的真实世界证据,并提出了可能的机制线索。
单次横断面样本为主,个体内变化仍需纵向验证
本研究纳入146,539份样本,但数据以不同个体在不同时间点的检测为主,尚不能完整反映同一个人在一年四季中的连续变化。
因此,目前结果主要说明不同季节的人群菌群结构存在差异,不能简单理解为每个人都会按照相同节律变化。未来如果能开展同一批受试者的纵向重复采样,将更有助于确认个体内菌群季节节律。
饮食、温度和地域信息可进一步细化
研究中的饮食和生活方式信息主要来自代理变量,缺少完整的逐日膳食、运动、睡眠、用药和感染记录。温度又与月份、节气、地域和饮食高度相关,较难完全区分各因素的独立作用。
此外,采样地未必等同于常住地,不同地区的气候、饮食和生活方式也存在明显差异。因此,饮食、温度和地域相关结果应作为总体趋势理解,不宜作过度具体的因果解释。
前面的分析表明,季节并不是直接作用于肠道菌群的单一因素。气温、日照、降水和物候变化,往往先改变食材供应、饮食选择和生活方式,再通过进入肠道的膳食纤维、抗性淀粉、植物多酚、蛋白质和脂肪等营养底物,影响菌群的生长、竞争与代谢。
人选择食物,食物也参与塑造人的感受。饥饿、饱足、偏好与情绪,既与记忆和习惯有关,也包含身体内部持续传来的反馈。
四时取象:餐桌自有时序
传统饮食取象中的“四时取象”,强调根据当时的气候、物候和身体状态安排饮食。春季嫩叶与芽菜渐多,夏季瓜果丰富,秋季谷物和果实成熟,冬季则更多见根茎、豆类和适合储藏的食物。
食材随四时轮换,餐桌也会获得更自然的多样性。不同食物为菌群提供的底物并不相同。
季节性食材的变化,可能参与塑造菌群结构和代谢活动的季节波动。节气在这里更像一种时间坐标,帮助我们看见气候、食物供应和生活方式如何共同变化。
编辑
在时间维度中理解菌群
研究肠道菌群的季节性,不只是描绘不同季节的菌群波动,也是在为样本采集、检测解读、干预评估和长期随访建立更多时间参照,把采样季节、近期饮食和生活状态纳入背景,有助于减少对单次结果的误读。
这也意味着,菌群检测不应只停留在静态数值和单个菌属的高低上。更有价值的方向,是结合人群数据库、季节参考、个体背景和纵向数据,让前后变化具有更可靠的比较基础。
二十四节气和饮食取象,为中国人提供了观察自然时间与食物变化的传统体系;现代菌群研究则将这种关系转化为可以记录、比较和分析的数据语言。
传统文化与菌群研究的相遇,让我们更清楚地理解,季节如何经由食物与生活方式,在人体内部留下微生态的印记。
-看见季节,便于更准确地理解菌群;
-理解菌群,帮助看清饮食、环境与身体之间的联系;
-看清这种联系,在现代生活中,重新找回与自然相应的节律。
谷禾健康
微小小单胞菌(Parvimonas micra)是一种革兰氏阳性、无芽孢、无运动性的专性厌氧球菌,也是 Parvimonas 属的模式种。
它在健康人群中通常以低丰度定植于口腔及胃肠道等黏膜部位,对低氧、炎症和屏障受损的微环境表现出明显适应性,因此常被视为连接黏膜共生状态与炎症相关疾病的重要条件致病菌。
与以糖发酵为主的细菌不同,P. micra 主要利用蛋白质和氨基酸获取能量,并以乙酸等代谢产物为代表;其黏附、侵入宿主细胞、调节炎症信号及与其他口腔致病菌形成协同生物膜的能力,使其在牙周炎、牙源性感染及部分深部感染中具有重要作用。
近年来,P. micra 在结直肠癌、口腔鳞状细胞癌和食管鳞状细胞癌等疾病相关样本中的富集现象,以及其菌株间毒力与耐药相关差异,也进一步提示:理解其生态位适应、代谢特征和宿主—菌群互作机制,对识别临床风险线索及探索干预靶点具有重要意义。
微小小单胞菌(Parvimonas micra)属于厚壁菌门(Firmicutes)下的Tissierellia纲,是Parvimonas属的模式种。
细胞形态
• 革兰氏阳性、专性厌氧,形态为球菌。
• 细胞直径大约 0.3–0.7 μm,常见分布是成对、链状或团块状。
• 不产芽孢、无运动性。
• 菌落一般为圆形、边缘整齐、乳白或灰色、表面光亮、隆起,并可见明显琥珀/黄褐色晕圈,且表现为β-溶血。
生长环境(生态位偏好)
• 适宜温度:37℃为其生长的最适温度。
• 厌氧生态位: P.micra是挑剔的专性厌氧菌,因此它更容易在低氧或无氧环境(深牙周袋、坏死组织、肠黏膜层)里生存。
• 炎症相关菌:P.micra被反复描述为一种炎症相关性病理共生体。当组织发生炎症、渗出增加、屏障被破坏时,它更容易富集并“站稳”。因而在很多宏基因组/扩增子研究中,它常常在慢性或急性炎症相关的黏膜部位出现更高丰度。
人群中的分布
• 健康状态下:往往丰度较低,是人体多个黏膜部位的常见组成菌,主要栖居于口腔,其次为胃肠道,亦可见于呼吸系统和女性泌尿生殖道。
• 口腔疾病:在牙周炎与牙源性感染中更易富集,并与疾病存在及严重程度相关;牙周炎病灶、感染根管及牙源性脓肿等部位尤为明显。
doi: 10.1002/1878-0261.13506.
• 系统感染(菌血症/深部感染):在“P. micra 单菌感染的病例报告与系统综述”中,最常见深部感染包括:脊柱椎间盘炎、关节炎,其次是硬膜外/腰部脓肿与感染性心内膜炎、慢性肺脓肿等。
重要危险因素:恶性肿瘤、糖尿病、关节置换术后等。
这带来的临床线索可能是:P. micra 可能长期在口腔/肠道作为低丰度共生菌存在,但当个体进入“免疫受损 + 屏障破坏”状态时,它可能从黏膜进入血流并导致深部感染。
遗传信息
• 基因组大小约 1.53–1.76 Mb。
• GC含量约 27.9–29.1 mol%。
• 部分菌株适应能力较强:研究者在 JM503A 菌株中发现它具有所谓的自然感受态特征,也就是它更容易从周围环境中“抓住并接收”外来的遗传物质;因此它在获得新功能(比如耐受性、代谢或适应性相关变化)方面可能更有优势。
代谢能力
• 核心能量策略:蛋白/氨基酸 → 乙酸
P. micra 不发酵任何糖类(葡萄糖/乳糖/蔗糖/核糖),而主要依赖蛋白与氨基酸发酵,产物中以乙酸为主要代表,以及微量丁酸和丙酸。
• 硫化氢(H₂S)与炎症
研究发现,在口腔相关菌群中,P. micra 被认为是硫化氢(H₂S)生成能力较强的菌种之一。因此其可能也与口臭有关。
由于 H₂S 可能与炎症强度、细胞毒性、肿瘤微环境调制相关,它为“炎症—代谢—生态重塑”的连锁机制提供了一个解释框架。
• 炎症灶的“营养-免疫双重驱动”
研究强调P. micra的致病生态位与其蛋白降解能力有关:炎症渗出会带来更多蛋白底物,它能把这些底物转化,同时也可能参与组织层面的损伤与免疫过程重塑。
注:基因组层面有“胆汁水解”相关的观察,但并非所有菌株一致具备。
• 常见酶特征
碱性磷酸酶阳性、吲哚酶阴性、过氧化氢酶阴性、尿素酶阴性。
耐药性
影响因子:3.893
• 对多西环素与克林霉素耐药显著上升
一项针对牙周致病P. micra的研究比较2006与2016年临床菌株体外耐药变化(300名重度牙周炎患者来源)显示:
多西环素耐药率:0.3% → 11.3%,显著上升。
克林霉素耐药率:2.0% → 47.3%,显著上升。
阿莫西林与甲硝唑:整体耐药率较低,且变化不显著。
• 耐药基因谱存在菌株特异性
基因组比较研究发现:通过数据库预测可见多个附属耐药基因,并存在显著的菌株间差异。例如:
tet(M)(与四环素类抗性相关的核糖体保护机制)在部分菌株出现。
ParC(DNA拓扑异构酶IV相关亚基)在特定菌株出现并与喹诺酮类抗性关联。
catA / catA11-A14 / catP等与氯霉素灭活相关基因在特定“疾病相关亚群”中富集。
研究还指出:存在外排泵/重金属抗性相关基因等,可能与多重耐受/多重耐药的背景生态有关。
注意:基因组预测不等同于所有基因必然表达、也不直接等价于临床抗生素耐药性;但它能解释“为什么耐药谱会在不同菌株/亚群中呈现异质性”。
P. micra与人体的互作
• 触发炎症信号
P. micra 基因组DNA可作为 TLR-9 激动剂,在牙龈成纤维细胞中促进 TNFα 与 IL-6等产生。
细胞壁组分可在巨噬细胞中诱导 TNFα、IL-8、IL-6、IL-1β、趋化因子 ( Rantes )等炎症因子,并可诱导与组织损伤相关的 MMP-9。
• 免疫逃逸与协同增强
在动物感染模型与多菌协同研究里,有证据提示 P.micra 可能通过降低活性氧(ROS)、损害吞噬功能等方式帮助自己或群落成员逃避天然免疫。
其免疫逃逸能力还能在与Fusobacterium nucleatum、Parvotella intermedia、Streptococcus intermedius等协培养时进一步增强。
另外还有“结合IgG Fc片段以减少局部调理素(opsonins)”的机制,从而抑制该群落内其他菌的吞噬清除。
与其他菌群的相互作用
P. micra 在口腔多种失衡生态中常常不是“单独作恶”,而是通过共聚集/营养交换/毒力放大/生物膜保护成为“关键协同成员”。
• 共聚集与可作为底物/基质
在体内与体外实验中,P. micra 与口腔上皮细胞有直接物理关联,且其黏附能力与细胞表面胞外多糖有关。
其可与多种口腔病理相关菌发生共聚集或互作,例如可与 Treponema denticola共聚集,并作为后者黏附的底物。
也可与 P. gingivalis与 F. nucleatum共聚集,且协培养时彼此可通过可溶性因子增强生长。
• 生物膜协同耐受
在 P. micra + F. nucleatum 的混合生物膜模型中,相比单一菌株生物膜,两个菌都表现出对次氯酸钠处理的敏感性下降,且该协同耐受随生物膜年龄增加而更明显。
• 毒力因子放大
P. micra可显著刺激P. gingivalis的生长并促进其产生牙龈蛋白酶(Gingipains)。
在包含多物种的体外模型中,即使体系中已有很多菌,gingipain活性仍可被P. micra特异性增强;例如双菌共培养 P. gingivalis–P. micra相较于P.gingivalis单独培养,gingipain活性可出现 >35倍提升。
这说明:P. micra不仅“能活在炎症里”,还可能通过互作把其他机会致病菌的毒力表达推向更高水平,从而使生态失衡。
健康状态:低丰度
P. micra 在健康条件下的丰度通常较低,主要存在于口腔/胃肠道黏膜生态中。
1
与牙周炎相关—患者中富集
编辑
影响因子:5.736
◮ P.micra在牙周炎患者中检出水平更高
研究发现,P.micra在牙周炎患者中呈现“炎症位点富集”,相较健康对照,它在牙龈沟液等牙周炎相关样本中的检出水平更高。
同时,研究在大鼠牙周炎模型中验证了其致病潜力:当P. micra相关作用发生时,牙周炎相关组织损伤表型会加重。
谷禾的口腔菌群检测数据库同样提示,P. micra 在牙周炎患者中的检出丰度更高。
编辑
◮ 为什么P. micra升高与加重牙周炎有关?
该牙周炎研究给出了相对具体的分子与细胞机制,可归纳为“入侵 + 逃避免疫/溶酶体清除 + 破坏成骨/免疫稳态”三条主线。
A.促进定殖后“进入宿主细胞/组织深处”:
研究提出,P. micra 可通过表面相关机制实现对宿主细胞的侵入,关键参与因素包括:TmpC(介导/参与细菌通过宿主通路进入或黏附并促进细胞内侵入的过程)。
B.逃避免疫清除—绕过溶酶体消除、干扰自噬相关清除:
该研究进一步指出,P. micra 能规避溶酶体消除,从而实现免疫逃逸。关键分子包括:AppA(与绕过溶酶体清除相关的机制要点)。同时,研究还强调其借助表面蛋白干扰宿主的自噬清除,使细菌得以存活并持续引发炎症与组织损伤。
C.重塑牙周炎微环境—激活炎症通路、抑制成骨分化:
P. micra 通过结合牙周韧带干细胞/相关受体,影响其功能,表现为:
-激活 NF-κB 与 ERK1/2 等信号通路;
-破坏牙周的免疫稳态(促进炎症环境维持);
-抑制成骨相关活性(从而不利于组织修复/加重破坏)。
2
其他口腔疾病—感染根管、根尖周炎
编辑
影响因子:6.574
P. micra在龈下微环境中可与牙龈卟啉单胞菌(P. gingivalis)等红色复合体致病菌进行”交叉对话”,驱动炎症、牙龈出血和牙周组织破坏,还被发现与以下口腔疾病相关。
①感染根管:与牙周病相关菌群高度重叠
在根管感染与急性牙源性感染中,NGS与培养往往能鉴定出与牙周炎相同的一组厌氧/机会致病菌,包括 Parvimonas 属(以及 Fusobacterium、Prevotella、Treponema、Porphyromonas 等)。在此背景下,P. micra 被指出为在牙周炎病灶与感染根管中常被检测到、且是优势/高比例成员之一。
②牙源性脓肿(尤其根尖周脓肿/急性牙源性感染)
P. micra 也会出现在急性牙源性感染相关的多微生物群落中(例如根尖周脓肿)。在这些感染中,P.micra 受益于炎症环境的营养与选择压力,并强调口腔疾病往往由多微生物协同驱动,而非单菌即可解释。
③根尖周慢性炎症
P. micra 在无病状态多为低丰度,而在慢性炎症/组织破坏环境中更易富集。根尖周慢性炎症本质上也是长期炎症与组织破坏并存的生态位,因此P.micra 更可能在该生态位中被“筛选出来”,从而影响慢性炎症维持与进展。
3
结直肠癌—患者中丰度升高
编辑
影响因子:6.126
编辑
影响因子:7.74
编辑
影响因子:7.971
◮ P. micra在结直肠癌患者粪便和肿瘤组织中丰度升高
多项研究发现,Parvimonas micra在结直肠癌(CRC)中的总体模式是:相较健康人群,CRC患者的粪便或肿瘤组织中其丰度升高;且“肿瘤组织富集”对预后关联更强。
大样本队列(309例粪便、165例结肠活检)显示:CRC患者的粪便与结肠活检中 P. micra 显著富集。
qPCR粪便检测研究(CRC患者38例、癌前病变/异常增生128例、对照63例)同样发现:CRC组的粪便中 P. micra 水平显著更高。
◮ 肿瘤组织中P. micra较高与预后较弱相关
在一项纳入257例结直肠癌(CRC)患者的研究中,作者发现肿瘤组织中较高的 P. micra 水平与5年肿瘤特异性生存下降相关。
同一研究指出:粪便样本中观察到的与预后相关性较弱。这支持这样一种理解:P. micra 更可能通过在肿瘤微环境中的定殖/作用参与疾病进展,而不是仅作为“远端排出物”的被动标志。
◮ “菌株/分型差异”:可能决定“真实致病力”
研究还强调 P. micra 的致癌促进作用可能呈菌株依赖性,并非所有分离株都同等强势;例如与致病进展相关的关键毒力因子在不同株中可呈差异表达。
◮ P. micra影响结直肠癌的可能机制?
P. micra 可能通过以下这几条机制影响结直肠癌:
1) 促进肿瘤发生/进展:增强上皮细胞增殖 + 调控Th17免疫轴;
2) 表观遗传重编程:诱导关键肿瘤抑制基因的DNA甲基化改变;
3) 关键毒力因子SirTM:ADP-核糖基转移酶触发H2B ADP-核糖化并激活促肿瘤转录信号;
4) “炎症性失衡生态位”使其更易定殖/共同参与多菌共生致病。
编辑
doi: 10.1016/j.jare.2026.03.035.
一句话总结:结直肠癌(CRC)患者中 Parvimonas micra 在粪便和肿瘤组织中通常显著升高;且肿瘤组织富集与更差生存更一致。
4
口腔鳞状细胞癌患者中富集
编辑
影响因子:12.121
◮ P. micra在口腔鳞状细胞癌组织中显著富集
研究发现Parvimonas micra在口腔鳞状细胞癌(OSCC)组织中显著富集,并且其丰度与肿瘤转移以及分期呈正相关;在体内外实验中,P. micra 可通过诱导缺氧/HIF-1α、促进糖酵解并激活自噬,从而增强OSCC的迁移、侵袭及淋巴结转移。
P. micra在OSCC组织中富集,并与OSCC转移相关
编辑
doi: 10.1038/s41467-025-62180-4.
◮ P. micra增强OSCC的迁移、侵袭
机制上,P. micra表面黏附素TmpC可与OSCC中过度表达的受体CKAP4结合,进而通过CKAP4-RanBP2轴稳定HIF-1α、并通过CKAP4-NBR1轴促进自噬通量;阻断CKAP4(使用马西替尼或抗体)可降低细菌附着与侵袭,并在体内外显著抑制P.micra促转移作用。
P. micra促进OSCC转移机制的示意图
编辑
doi: 10.1038/s41467-025-62180-4.
研究提示TmpC-CKAP4轴可能是OSCC淋巴结转移的潜在治疗靶点,并将P. micra确立为推动OSCC转移的重要肿瘤内病原体之一。
5
食管鳞状细胞癌患者中富集
编辑
影响因子:13.116
◮ P. micra在食管鳞状细胞癌组织中富集
该研究探讨了肿瘤内微生物群在食管鳞状细胞癌(ESCC)中的作用机制。对119例ESCC肿瘤与邻近正常组织进行宏基因组测序,并结合45例样本的单细胞转录组,发现厌氧口腔来源菌 Parvimonas micra在肿瘤组织中显著富集,且与不良预后相关;其丰度同时与肿瘤微环境中调节性T细胞(Treg)浸润增加呈正相关。
◮ P. micra诱导Treg分化与免疫抑制
进一步通过细胞与动物实验揭示:P. micra 通过分泌氨基酸发酵代谢物 p-cresol(对甲酚)(并包括其衍生物)提高CD4+ T细胞中的活性氧(ROS),进而诱导FOXP3+ Treg分化与免疫抑制,从而促进肿瘤生长;此外,ROS清除剂NAC可逆转该效应。
肿瘤富集细菌物种的鉴定及其在ESCC中的预后相关性
编辑
doi: 10.1126/sciadv.ady1644.
研究为“肿瘤内微生物—代谢物—免疫抑制—肿瘤进展”的机制链条提供了证据,并提示其对预后评估及联合治疗策略的潜在价值。
6
炎症感染与菌血症
◮ P. micra有时会导致菌血症
Parvimonas micra 在某些情况下可能引起菌血症。从发现菌血症的研究来看:
入侵部位往往与口腔感染/操作有关,且高龄、糖尿病、肿瘤等危险因素显著集中。
常见深部感染包括脊柱椎间盘炎、关节炎、硬膜外/腰部脓肿、感染性心内膜炎等。
◮ 肺脓肿
2019年1月至2020年7月浙江大学医学院附属第一医院收治的5例“与微小小单胞菌(Parvimonas micra)相关的慢性肺脓肿”。患者多为老年男性且有吸烟史、部分合并牙周炎。
◮ 脊柱椎间盘炎
还有研究报告了两例由Parvimonas micra引起的脊柱椎间盘炎(spondylodiscitis)。
总体而言,P. micra 的核心特点可概括为“低丰度定植、炎症环境富集、厌氧代谢适应与多菌群协同”。作为口腔和胃肠道等黏膜生态系统中的常见成员,它在健康状态下并不一定意味着疾病;但当局部氧张力下降、组织屏障破坏或宿主免疫功能受损时,其可借助氨基酸发酵、黏附侵入、炎症诱导及免疫逃逸等特性获得定殖优势,并参与组织损伤和感染进展。
现有资料显示,P. micra 不仅与牙周炎、感染根管、牙源性脓肿及菌血症相关,也在多种消化道和头颈部肿瘤相关样本中呈富集趋势。需要强调的是,其致病潜力、耐药相关基因与临床表现存在菌株差异,基因组预测亦不能直接等同于临床耐药性或因果作用。
因此,后续研究与临床解读应结合菌株分型、宿主背景、共生菌群结构及功能实验,审慎评估其作为疾病风险标志物、机制研究对象和潜在干预靶点的价值。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Li Z, Wang P, Gao H, Zhi M, Gu X, Sun T, Wang Y, Shen S, Ma X, Ji X, Zhang X, Liu D, Feng Q. Parvimonas micra exacerbates periodontitis by infiltrating host cells through TmpC and circumventing lysosomal elimination via AppA. EBioMedicine. 2026 Mar;125:106187.
Isola G. From dysbiosis to cellular invasion: reassessing the pathogenic role of parvimonas micra in periodontitis as an understudied pathobiont. EBioMedicine. 2026 Apr;126:106202.
Li JW, Wyllie RM, Jensen PA. A Novel Competence Pathway in the Oral Pathogen Streptococcus sobrinus. J Dent Res. 2021 May;100(5):542-548.
Ternes D, Karta J, Tsenkova M, Wilmes P, Haan S, Letellier E. Microbiome in Colorectal Cancer: How to Get from Meta-omics to Mechanism? Trends Microbiol. 2020 May;28(5):401-423.
Higashi DL, Krieger MC, Qin H, Zou Z, Palmer EA, Kreth J, Merritt J. Who is in the driver’s seat? Parvimonas micra: An understudied pathobiont at the crossroads of dysbiotic disease and cancer. Environ Microbiol Rep. 2023 Aug;15(4):254-264.
Qi H, Gao H, Li M, Sun T, Gu X, Wei L, Zhi M, Li Z, Fu D, Liu Y, Wei Z, Dou Y, Feng Q. Parvimonas micra promotes oral squamous cell carcinoma metastasis through TmpC-CKAP4 axis. Nat Commun. 2025 Mar 7;16(1):2305. doi: 10.1038/s41467-025-57530-1. Erratum in: Nat Commun. 2025 Jul 25;16(1):6856.
Guo S, Cao M, Wu J, Ma W, Liang D, Xie H, Xie Y, Luo Z, Lai P, Liu D, Zeng W, Zheng J, Xing M, Yin X, Xia M, He Z. Parvimonas micra promotes carcinogenesis of colorectal cancer through phenyllactic acid-induced DNA damage. Clin Transl Med. 2026 May;16(5):e70667.
Cheng G, Jiang X, Zhu L, Chen X, Liu R, Zhu L, Hu X, Zhang S, Tan W, Lin D, Zhang L, Wu C, Li M. Intratumoral Parvimonas micra promotes esophageal squamous cell carcinoma via p-cresol-induced Treg differentiation. Sci Adv. 2026 Feb 20;12(8):eady1644.
Chang Y, Yang C, Hou F, Zhu Y, Huang Z, Wang L, Liu Y, Zhang H, Qin X, Hao Z, Li D, Tan Y, Bai Y, Ding L, Gao H, Zhi F, Zhang F, Bi Y, Yang R. Parvimonas micra-derived SirTM: An ADP-ribosyltransferase as a novel driver in colorectal cancer progression. J Adv Res. 2026 Mar 17:S2090-1232(26)00256-0.
Conde-Pérez K, Buetas E, Aja-Macaya P, Martin-De Arribas E, Iglesias-Corrás I, Trigo-Tasende N, Nasser-Ali M, Estévez LS, Rumbo-Feal S, Otero-Alén B, Noguera JF, Concha Á, Pardiñas-López S, Carda-Diéguez M, Gómez-Randulfe I, Martínez-Lago N, Ladra S, Aparicio LA, Bou G, Mira A, Vallejo JA, Poza M. Parvimonas micra can translocate from the subgingival sulcus of the human oral cavity to colorectal adenocarcinoma. Mol Oncol. 2024 May;18(5):1143-1173.
Cenicacelaya Olabarrieta X, Cabello Vallejo M, Morell-Hita JL, Macía-Villa C. Case Report and Literature Review of Parvimonas micra: Difficult-to-Treat Arthritis in Hiding. Healthcare (Basel). 2023 Nov 1;11(21):2879.
Khan MS, Ishaq M, Hinson M, Potugari B, Rehman AU. Parvimonas micra bacteremia in a patient with colonic carcinoma. Caspian J Intern Med. 2019 Fall;10(4):472-475.
Löwenmark T, Löfgren-Burström A, Zingmark C, Ljuslinder I, Dahlberg M, Edin S, Palmqvist R. Tumour Colonisation of Parvimonas micra Is Associated with Decreased Survival in Colorectal Cancer Patients. Cancers (Basel). 2022 Nov 30;14(23):5937.
Zhao L, Zhang X, Zhou Y, Fu K, Lau HC, Chun TW, Cheung AH, Coker OO, Wei H, Wu WK, Wong SH, Sung JJ, To KF, Yu J. Parvimonas micra promotes colorectal tumorigenesis and is associated with prognosis of colorectal cancer patients. Oncogene. 2022 Sep;41(36):4200-4210.
Bergsten E, Mestivier D, Donnadieu F, Pedron T, Barau C, Meda LT, Mettouchi A, Lemichez E, Gorgette O, Chamaillard M, Vaysse A, Volant S, Doukani A, Sansonetti PJ, Sobhani I, Nigro G. Parvimonas micra, an oral pathobiont associated with colorectal cancer, epigenetically reprograms human colonocytes. Gut Microbes. 2023 Dec;15(2):2265138.
Higashi DL, McGuire S, Abdelrahman YM, Zou Z, Qin H, Anderson D, Palmer EA, Kreth J, Merritt J. Development of the First Tractable Genetic System for Parvimonas micra, a Ubiquitous Pathobiont in Human Dysbiotic Disease. Microbiol Spectr. 2022 Apr 27;10(2):e0046522.
Rams TE, Sautter JD, van Winkelhoff AJ. Antibiotic Resistance of Human Periodontal Pathogen Parvimonas micra Over 10 Years. Antibiotics (Basel). 2020 Oct 17;9(10):709.
Suresh R, Jayachandiran S, Balu P, Ranganadin P, Dhamodharan R. Comparative genome analysis of human pathogen Parvimonas micra revealed strain JM503A as potential novel species in the genus Parvimonas and high intra-species functional diversity. Microb Genom. 2025 Sep;11(9):001511.
谷禾健康
高血压是全球范围内最常见的心血管疾病之一,被称为威胁人类健康的”无声杀手”。在很多人看来,高血压只是“血管的问题”,长期以来,习惯于从遗传、饮食、压力等角度去理解它的成因,却很少意识到,高血压其实是牵动全身多个系统的“联动反应”。不仅与单一因素相关,还涉及神经系统、内分泌系统、体液系统和免疫系统等多个器官系统。
与此同时,在我们身体深处还住着另一位”隐形参与者”——肠道菌群。数以万亿计的微生物栖息于消化道,它们并非沉默的旁观者,而是深度参与免疫调节、代谢合成乃至神经信号传递的活跃角色。那么,血压的升降,是否也与这些微生物息息相关呢?
近年来研究带来了更清晰的解释:在高血压状态下,肠道紧密连接蛋白异常表达、肠黏膜通透性升高,菌群结构失调,导致肠屏障受损。此时,细菌及其代谢产物(如内毒素)更易越过黏膜进入体循环,引发系统性炎症反应,并进一步损害心血管功能,形成“肠漏—炎症—血压升高”的恶性循环。
与此同时,经典危险因素如高盐饮食也已被证实会通过改变肠道菌群组成(例如厚壁菌门/拟杆菌门比值异常升高)影响血压水平。这些发现为我们理解高血压的发病机制提供了一个全新的病理生理框架:肠道,或许正是血压调控一个被长期忽视的关键节点。
更令人振奋的是,运动训练展现出了打破这一恶性循环的潜力。动物实验与人群研究一致表明,中等强度运动能够恢复肠绒毛长度、增加杯状细胞数量、上调紧密连接蛋白表达,从而修复肠道屏障、抑制局部炎症;同时,运动还可重塑肠道菌群结构及其代谢谱(如Faecalibacterium prausnitzii、双歧杆菌属、乳杆菌属、Roseburia属和拟杆菌属),经由短链脂肪酸(SCFAs)、脂多糖(LPS)、氧化三甲胺(TMAO)及胆汁酸等多条代谢通路参与血压调控。不仅如此,运动通过肠-脑轴双向通路影响交感神经活动与神经炎症,进一步从中枢层面发挥持续降压效应。换言之,一次规律的运动,不仅锻炼了肌肉与心肺,也在悄然重塑着我们肠道内的微生态世界。
本文将围绕”肠道菌群—运动—高血压“这一三角关系,系统梳理高血压状态下肠道结构与功能的病理改变,深入解析运动经由菌群代谢物、免疫调节与肠脑轴等多重通路发挥降压作用的科学证据,并探讨这一领域对未来高血压防治策略的启示。通过这些来自微观世界的发现,能为广大读者打开一扇重新认识高血压的窗口——血压的管理,或许不仅在于”管住嘴、迈开腿”这般简单,更在于倾听肠道里那些微生物与身体之间的深层对话。
doi: 10.1080/10641963.2025.2608905.
高血压、肠道健康与锻炼之间并非孤立存在,而是可以通过多重生理通路相互牵连。
高血压状态下的肠道结构与功能改变
高血压与肠道健康之间存在密切且双向的联系。
↘ 高血压患者常伴随肠道屏障失衡
动物实验证实,高血压状态伴随肠道紧密连接蛋白表达异常、肠黏膜通透性增加以及菌群结构失调。
在自发性高血压大鼠等模型中,可观察到肠绒毛萎缩、杯状细胞数量减少、肠壁纤维化及屏障功能减退等病理改变。
↘ 肠屏障受损使有害物质进入从而触发炎症反应
肠屏障完整性受损使得细菌及其代谢产物(如内毒素)易于跨越黏膜进入体循环,进而触发系统性炎症反应,并对心血管系统产生负面影响。这一”肠漏—炎症—血压升高“的恶性循环,为理解高血压的发病机制提供了新的病理生理框架。
高盐饮食可能通过菌群失调影响高血压
高盐饮食是高血压与心血管疾病的主要诱因之一。
↘ 高盐饮食伴随肠道菌群改变和血压升高
近期研究表明,肠道菌群失调可能是盐敏感性高血压(SSH)的重要致病因子。研究证实,实验大鼠在8%钠盐饮食条件下,肠道微生物群组成发生显著改变,同时收缩压与舒张压明显升高。
↘ SSH 患者厚壁菌门/拟杆菌门比值升高
进一步临床研究显示,SSH 患者与非盐敏感性高血压患者之间存在明显的菌群差异,特定细菌丰度的变化与 SSH 严重程度显著相关,其中最具代表性的改变是厚壁菌门/拟杆菌门(F/B)比值异常升高。
运动展现出修复肠道屏障和降压效果
↘ 运动能改善高血压患者的肠道健康
运动训练已被证明能显著改善高血压动物模型中的肠道健康。它可恢复肠绒毛长度、增加杯状细胞数量、减轻肠壁纤维化,并上调紧密连接蛋白的表达水平,从而改善肠道病理状态并抑制局部炎症。这些效应有助于维持肠屏障完整性,减少有害物质向循环系统的渗漏。
↘ 运动可能通过肠脑轴降压
在自发性高血压(SHR)模型中,运动训练展现出与肠-脑轴重新平衡密切相关的持续降压效果:运动训练可能通过调节肠道微生物群的组成及其代谢产物,影响钠盐的吸收与代谢,从而发挥血压调节作用。
该干预能够减轻肠壁结构异常、防止屏障破坏,并抑制有害因子的系统性扩散,从而恢复肠道微生物平衡,经由肠-脑轴双向通路积极影响血压。
通过16S rRNA测序,研究者发现运动训练可促进与正常血压相关的肠道菌群在SHR大鼠中增加;肠道微生态的恢复对血压具有积极作用。
↘ 运动后毛螺菌科中的产乙酸、丁酸盐菌增加
另有研究表明,运动训练可通过重塑肠道微生物组成调节血压,并显著改善高血压模型的菌群结构:高血压组表现出厚壁菌门(firmicutes)增多和拟杆菌门(Bacteroidetes)减弱,干预后这一比例发生逆转。这一转变的特点是毛螺菌科(Lachnospiraceae)和瘤胃球菌科(Ruminococcaceae)科中产乙酸盐和丁酸盐的细菌数量增加,乳酸产菌水平下降。
尽管运动影响肠道微生物及血压的具体机制仍不清晰,但现有证据提示,高血压与肠道之间的“对话”受肠道微生物群及其代谢物调控。
★ 菌群多样性与血压有关
研究发现,肠道微生物多样性与血压水平呈负相关,即菌群多样性越低,血压升高的风险越大。肠道微生物群通过产生多种生物活性代谢物参与血压调控,其中短链脂肪酸、脂多糖、三甲胺-N-氧化物及胆汁酸四条通路研究最为深入。
肠道微生物群及其代谢物影响血压调节
doi: 10.1080/10641963.2025.2608905.
而运动训练可通过重塑菌群结构与代谢谱,经由这些通路发挥降压效应。
短链脂肪酸(SCFAs)通路
—“免疫抗炎 + 肠屏障保护、激活肠源激素-中枢调控”
短链脂肪酸(SCFAs)——主要包括乙酸盐、丁酸盐和丙酸盐——是最早被发现的血压调节性肠道代谢物之一。
↘ SCFAs通过G蛋白偶联受体调节血压中枢
SCFAs 由肠道微生物发酵膳食纤维产生,可直接激活位于肠黏膜中的G蛋白偶联受体(GPCRs),这些受体广泛表达于从胃肠道黏膜到免疫细胞与神经系统的多种细胞类型。受体激活刺激肠内分泌细胞释放胰高血糖素样肽-1(GLP-1)和肽 YY(PYY)等肠源性激素,后者经血液循环到达中枢神经系统,调节血压调控中枢的活性。
↘ 丁酸盐可以抑制Th17介导的血管炎症反应
与此同时,SCFAs 的缺乏会破坏肠道屏障完整性,进而促使血压升高。其中,丁酸盐还可通过抑制组蛋白去乙酰化酶(HDACs)下调促炎基因表达,并促进调节性 T 细胞分化,从而抑制 Th17 介导的血管炎症反应。
↘ 运动可能通过短链脂肪酸通路发挥降压作用
影响因子:3.998
在人群干预层面,有研究对 17 名超重成年女性实施了为期六周的耐力训练,发现重塑了血清/粪便代谢谱并改善肠道菌群多样性,伴随与心血管相关的脂质代谢特征变化(如血清溶血磷脂酰胆碱升高、粪便甘油磷酸胆碱升高,并与阿克曼氏菌(Akkermansia)丰度相关)。
并且运动训练后参与者粪便中拟杆菌属、毛螺菌科细菌及梭菌纲细菌显著富集,而这些类群均与 SCFA 的产生密切相关,提示运动训练可经由短链脂肪酸(SCFA)通路发挥降压作用。
脂多糖(LPS)通路
—“抑制内毒素产生与释放、减弱炎症/内毒素血症”
脂多糖是革兰氏阴性菌外膜的主要内毒素成分。
↘ 高血压患者脂多糖代谢通路显著增强
影响因子:4.545
肠道微生物群分析显示,高血压患者体内脂多糖(LPS)的生物合成与代谢通路活性显著高于健康对照。动物研究进一步发现:2月龄与21月龄的小鼠经四周训练后,血清 LPS 水平均出现下调。
↘ 运动可能减少了脂多糖的产生和释放
在菌群层面,以革兰氏阴性菌为主的丰度与脂多糖(LPS)水平呈正相关,而运动训练可降低拟杆菌属等的丰度,从而减少 LPS 的产生与释放。LPS 诱导的炎症反应及内毒素血症的减弱,对高血压患者具有明确的治疗获益。
氧化三甲胺(TMAO)通路
—“降低TMAO蓄积,改善血管功能与血压关联风险”
三甲胺在体内氧化后形成三甲胺-N-氧化物(TMAO),其产生依赖于肠道微生物群的代谢活动。
↘ 运动能降低氧化三甲胺浓度来改善血压
编辑
影响因子:4.556
人群研究表明,血液 TMAO 水平升高与血管功能受损及血压升高相关。在运动干预方面,久坐小鼠在西方饮食条件下 TMAO 水平显著高于具有运动训练的小鼠;而当运动小鼠额外补充 TMAO 后,其 TMAO 水平与久坐小鼠趋于接近。
编辑
doi: 10.3390/ijms24032399.
这一结果提示,运动训练可能通过降低 TMAO 水平,帮助维持血压与血管健康。
胆汁酸通路
—“通过FXR/TGR5受体信号调控血压,并与心血管风险相关”
肠道微生物群在胆汁酸的二次代谢中发挥关键作用。除参与胆固醇代谢外,胆汁酸还可通过激素分泌与受体信号机制影响血压。
↘ 共轭胆汁酸可通过调控胆汁酸受体活性影响血压
在血管紧张素 II(AngII)灌注小鼠模型中发现,粪便胆汁酸排泄量增加,且与冠状动脉疾病风险呈负相关,提示胆汁酸水平可能与心血管疾病风险相关。
进一步研究表明,共轭胆汁酸可通过调节法尼醇 X 受体(FXR)和 TGR5 等胆汁酸受体活性来降低血压,揭示了胆汁酸在血压调控中的潜在作用。
↘ 运动可通过影响胆汁酸水平调节血压
编辑
影响因子:3.469
在运动干预层面,一项针对年轻久坐成年人的研究显示,阻力运动训练可提高血浆胆汁酸水平,表明胆汁酸水平可经由运动训练调节,进而可能对血压控制产生积极影响。
综合上述四条通路可以看出,中等强度运动训练不仅能够显著影响人类肠道微生物群的结构与多样性,也会进一步改变其相关代谢物的组成与代谢特征。
更重要的是,这些与肠道微生态相关的改变能够通过短链脂肪酸(SCFAs)、脂多糖(LPS)、氧化三甲胺(TMAO)以及胆汁酸等多条代谢通路参与血压调控过程,从而在肠-宿主互作层面为血压相关的改善提供潜在基础。
然而,这些效应背后的具体分子机制仍有待进一步阐明。
肠道不仅是消化器官,也是人体最大的免疫器官。肠道微生物群通过与免疫细胞的相互作用调节免疫系统的反应。肠道微生物群的平衡使免疫细胞能够高效识别并消除病原体,从而维持生物体的健康状态。
肠道屏障受损:高血压“微生态-炎症”起点
文献表明,高血压的发生机制与肠道屏障完整性受损密切相关。高盐饮食或过度的交感神经激活可破坏肠道紧密连接蛋白,进而增加肠道通透性。
↘ 高盐饮食脂多糖增加并诱发炎症反应
通透性升高使细菌、微生物及其代谢物进入循环,促进中性粒细胞活化。在相关病理条件下,肠道微生物群失调表现为脂多糖(LPS)产生增加;LPS与Toll样受体4(TLR4)相互作用引发炎症反应。随后,当LPS从肠道转移至循环系统并与LPS结合蛋白(LBP)形成复合物时,可激活免疫系统并产生促炎细胞因子。
这些因子不仅推动全身炎症,也可通过激活交感神经系统进一步增加周围血管阻力,从而导致血压升高;此外,系统性LPS可能直接作用于中枢神经系统,诱发神经炎症,进一步加重高血压的发病过程。
T细胞活化与血管内皮损伤
编辑
影响因子:7.713
↘ 自发性高血压免疫球蛋白A缺失、菌群失衡
研究发现,自发性高血压大鼠(SHR)在多种部位出现选择性IgA缺乏,在粪便、盲肠内容物、血清及肝/小肠中IgA水平显著低于正常组,且在不同来源、不同性别及不同年龄段均观察到该趋势。
肠道菌群失调伴随清除能力不足信号:SHR既有粪便菌负荷减少(且部分菌群如双歧杆菌几乎难以检测),又有盲肠细菌负荷升高,提示菌群生态失衡与排出/清除异常并存。
↘ 活化的T细胞浸润主动脉会损害内皮功能并升高血压
T细胞在促炎性高血压级联反应中至关重要。活化的T细胞随后浸润主动脉,损害内皮功能并升高血压,进一步证实T细胞激活在高血压发病机制中的关键作用。
运动:修复肠道屏障、降低免疫过度激活
编辑
影响因子:7.74
运动训练对高血压的有益作用可部分通过调节并修复肠道屏障实现:肠道屏障的改善能够改变肠道环境,抑制有害细菌的增殖与活动,从而减少其对机体的不利影响。
↘ 中等强度的运动有效降低免疫过度激活和炎症
研究指出,高强度运动可能导致肠道紊乱并增加通透性;而中等强度运动则可通过促进肠道蠕动并增加有益微生物,积极改善肠道健康。
在一项为期八周的自发性高血压(SHR)运动训练研究中发现,运动训练可提高小肠上皮细胞中紧密连接蛋白表达并降低肠道通透性,从而改善肠道屏障结构。这些改变可最大限度减少肠壁损伤与渗漏,限制有害物质进入循环,进而降低免疫系统过度激活与炎症反应,促进运动训练的降血压效果。
不同运动的潜在机制会诱导肠道微生物群的变化
编辑
doi: 10.1080/19490976.2024.2404141.
适当的锻炼能促进胆汁酸(BA)的产生,缩短肠道通过时间,促进肌脉的释放,从而促进健康的肠道微生物群的形成。然而,过度运动可能导致严重的热应激,减少肠道血流,促进氧化应激,并激活HPA轴,最终导致微生物群失调。
微生物组重塑与免疫调节:益生菌增多、相关炎症减轻
↘ 运动增加双歧杆菌和乳杆菌有益于免疫,促进抗炎细胞因子分泌
在高血压模型中,运动训练能够减少与高血压相关的微生物种类丰度,同时增加支持正常血压的微生物种类。具体而言,运动训练提高双歧杆菌(Bifidobacterium)和乳酸杆菌(Lactobacillus)水平,并降低螺旋杆菌(Helicobacter)。
作为关键益生菌,双歧杆菌与宿主免疫调节密切相关:其可抑制Th2和Th17细胞分化,并促进抗炎细胞因子(如白介素-27和干扰素β)的表达。
因此,通过运动训练提升肠道内双歧杆菌的丰度,可能有助于缓解炎症并调节高血压相关的血压变化。
注:尽管现有研究已揭示肠道微生物群失调、免疫激活与高血压之间的关联,以及运动训练通过保护肠道健康改善高血压的潜在机制,但鉴于人类肠道微生物群组成、免疫反应与环境影响因素相较动物模型更为复杂,仍需进一步研究。
运动调节肠道微生物群和修复肠道屏障来改善血压
编辑
doi: 10.1080/10641963.2025.2608905.
肠脑轴是连接消化道与中枢神经系统的复杂双向通讯网络,借助神经、激素与免疫信号共同调控机体功能。
PVN小胶质激活致交感增强诱发神经炎症
在下丘脑室旁核(PVN)中,高血压相关信号可被感知并经中枢通路传递,从而增强交感神经活动。该过程伴随PVN内小胶质细胞激活:小胶质细胞被激活后诱发神经炎症,并进一步提升对肠道的交感信号输出。
编辑
doi: 10.1080/10641963.2025.2608905.
值得注意的是,这种交感增强与炎症状态密切耦合;炎症可反过来影响肠道微生物群组成,并改变肠道通透性,可能形成“中枢炎症—肠道稳态失衡—再反馈”的病理路径。
调整肠道菌群缓解肠脑轴交感亢进
运动训练有助于调节肠道微生物群的平衡,而肠道微生物群又通过自主神经系统影响肠脑轴的功能,而自主神经系统对管理高血压至关重要。
↘ 运动与粪菌移植可调节肠道微生物群,缓解神经炎症,从而影响血压
研究人员将经过运动训练的自发性高血压(SHR)小鼠粪便微生物群(FMT)移植到未接受运动训练的人群中。FMT显著降低了运动训练SHR中的交感神经活动,并改善了下丘脑PVN小胶质细胞激活,从而缓解了神经炎症。
通过胃囊输送了受体SHR大鼠的粪便样本。比较分析显示,受体SHR大鼠的小胶质细胞数量和大小显著增加。这种小胶质细胞活动的增加减弱了神经元活动,从而减少了交感神经活动。这些发现表明FMT改善了高血压中肠脑轴功能受损,突显了肠道微生物群在血管功能障碍和高血压中的作用。
SCFAs跨血脑调控肾素-血管紧张素系统
肠道微生物可通过发酵膳食纤维产生短链脂肪酸(如乙酸盐、丙酸盐和丁酸盐)。这些代谢物不仅为肠道上皮细胞提供能量,还能穿过血脑屏障并直接影响中枢相关区域。
编辑
影响因子:3.707
有研究进一步发现,SCFAs在脑内可调节G蛋白偶联受体(GPCRs),例如GPR41与GPR43的活性,并通过抑制肾素-血管紧张素系统(RAS)来减少血管炎症。
微生物群-肠道-大脑轴
编辑
doi: 10.3389/fnins.2023.1302957.
短链脂肪酸(SCFAs)作为肠脑轴关键信号分子,可通过调节神经递导与炎症反应积极改善心血管健康;同时,微生物群—大脑功能—行为之间的复杂联系也可能由微生物产生的神经活性物质(如多巴胺、5-羟色胺)介导。
肠菌产生5-羟色氨影响血压
除短链脂肪酸(SCFAs)外,肠道微生物还可通过合成神经递质前体,直接或间接调节中枢神经系统兴奋性。部分菌株参与5-羟色氨酸(一种血清素前体)的合成;另一些菌株则参与色氨酸代谢,从而调控色氨酸与5-羟色胺水平。
↘ 运动调节肠道菌群并可影响5-羟色胺水平
有氧运动训练可调节5-羟色氨酸/5-羟色胺相关水平:乳酸乳球菌(Lactococcus lactis)、植物乳杆菌(Lactobacillus plantarum)、嗜热链球菌(Streptococcus thermophile)、摩根氏菌(Morganella morganii)、肺炎克雷伯菌(Klebsiella pneumoniae)等菌群可与血清素合成相关;其中能够产生5-羟色胺的细菌(尤其乳酸杆菌属)可能随有氧训练促进的微生物多样性增加而上调。
因而,有氧运动可能通过提高与5-羟色胺生成相关的有益菌株丰度,对高血压调控产生积极影响。
综上所述,高血压、肠道健康与运动三者之间并非孤立存在,而是通过”菌群—代谢—免疫—神经“多重通路紧密交织、相互制衡的有机整体。一方面,高血压状态会引发肠道紧密连接蛋白表达异常、肠黏膜通透性增加及菌群结构失调,形成”肠漏—炎症—血压升高“的恶性循环;高盐饮食等诱因进一步加剧厚壁菌门/拟杆菌门比值异常,推动盐敏感性高血压的发生。
另一方面,中等强度运动能够帮助恢复肠绒毛结构、上调紧密连接蛋白、重塑菌群组成,经由短链脂肪酸、脂多糖、氧化三甲胺及胆汁酸四条核心代谢通路参与血压调控;同时通过富集双歧杆菌、乳杆菌等有益菌优化免疫反应,抑制 Th17 介导的血管炎症与 T 细胞过度活化,并借助肠—脑轴双向通讯缓解下丘脑室旁核(PVN)小胶质细胞激活所致的交感亢进与神经炎症。
由此可见,肠道菌群是连接运动与血压改善的关键”中介枢纽”:运动以肠道微生态为支点,撬动了从局部屏障修复到中枢神经调控的层层降压效应。
基于这一“肠—免疫—脑—血管”多维调控网络,以肠道菌群为干预靶点的非药物防治策略展现出可观的未来治疗可行性:
• 运动处方精准化:依据个体菌群特征(如产SCFA 菌丰度、F/B 比值、LPS 水平)定制运动类型、强度与周期,有望实现“菌群分型—运动匹配”的个性化血压管理,避免高强度运动反而加重肠道紊乱的风险。
• 菌群定向干预:粪菌移植(FMT)、特定益生菌(如双歧杆菌、乳杆菌)与益生元的补充,可承接运动对菌群的重塑效应,为无法耐受运动或运动效果有限的人群提供替代或协同路径——研究已证实,运动训练的粪菌移植可显著降低交感神经活动并缓解神经炎症,为”菌群治疗”提供了直接证据。
• 代谢物靶向调控:针对 SCFAs、TMAO、胆汁酸等关键代谢物的药物或营养干预,可在通路层面精准干预血压调控节点,弥补单纯生活方式干预的不足。
• 肠脑轴干预:通过调节菌群来源的 5-羟色胺、多巴胺等神经活性物质及 SCFAs 跨血脑屏障对肾素—血管紧张素系统(RAS)的抑制,有望从中枢层面打破”中枢炎症—肠道失衡—交感亢进”的病理反馈环。
需要指出的是,现有证据多来自动物模型与短期人群干预;而在人类中,肠道菌群组成、免疫反应及环境因素更为复杂,运动影响菌群与血压的具体分子机制仍待进一步阐明。未来研究应在更大样本、多中心、长随访的人群队列中验证运动—菌群—血压之间的因果关系,厘清不同运动模式(耐力、阻力、有氧)对菌群代谢谱的差异化作用,并探索在菌群分型基础上制定精准运动处方,及益生菌/FMT与运动的联合干预方案。随着机制研究深化与转化医学推进,“以动调菌、以菌调压”有望成为高血压综合管理中兼具可操作性、安全性与长期获益的重要防治范式,为这一全球性慢病防控提供新路径。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Zhao M, Liu Q, Shi NJ, Li Y, Li HB. Gut microbiota and hypertension: role of exercise training. Clin Exp Hypertens. 2026 Dec 31;48(1):2608905.
Gao C, Wei J, Lu C, Wang L, Dong D, Sun M. A new perspective in intestinal microecology: lifting the veil of exercise regulation of cardiometabolic diseases. Gut Microbes. 2024 Jan-Dec;16(1):2404141.
Hintikka JE, Ahtiainen JP, Permi P, Jalkanen S, Lehtonen M, Pekkala S. Aerobic exercise training and gut microbiome-associated metabolic shifts in women with overweight: a multi-omic study. Sci Rep. 2023 Jul 11;13(1):11228.
Grylls A, Seidler K, Neil J. Link between microbiota and hypertension: Focus on LPS/TLR4 pathway in endothelial dysfunction and vascular inflammation, and therapeutic implication of probiotics. Biomed Pharmacother. 2021 May;137:111334.
El Hage R, Al-Arawe N, Hinterseher I. The Role of the Gut Microbiome and Trimethylamine Oxide in Atherosclerosis and Age-Related Disease. Int J Mol Sci. 2023 Jan 25;24(3):2399.
Li H, Xu M, Xu X, Tang Y, Jiang H, Li L, Xia W, Cui N, Bai J, Dai Z, et al. Faecalibacterium prausnitzii Attenuates CKD via butyrate-renal GPR43 axis. Circ Res. 2022;131:e120–e34.
Yang T, Li H, Oliveira A, Goel R, Richards E, Pepine C, Raizada M. Transcriptomic signature of gut microbiome-contacting cells in colon of spontaneously hypertensive rats. Physiol Genomics. 2020;52:121–132.
谷禾健康
刷牙时牙龈反复出血、口臭迟迟难以改善、明明认真刷牙却仍频繁发生龋齿,或是血糖、体重出现异常——这些看似彼此无关的健康问题,背后都可能与口腔微生态有关。
月形单胞菌属(Selenomonas)正是这样一类值得关注、却并不为大众熟悉的微生物。它们属于韦荣氏菌科(Veillonellaceae),是一类革兰氏阴性厌氧菌,细胞多呈弯曲杆状、新月形或肾形,能够运动。主要分布于人体口腔、胃肠道等低氧环境。尤其在龈下牙菌斑和牙周袋这类氧气稀少、营养丰富的微环境中。
月形单胞菌属(Selenomonas)不能被简单地定义为“有害菌”或“益生菌”。它在健康人群中可以是复杂微生物群落的普通成员;但当口腔卫生状况下降、菌斑生物膜逐渐成熟、局部炎症持续,或宿主本身存在易感因素时,某些种类可能成为推动疾病表型的条件致病菌。例如,Selenomonas noxia 在牙周炎人群中更易检出,并因能够产生硫化氢等代谢产物而可能与口臭、局部屏障损伤和炎症维持有关;Selenomonas sputigena 在儿童龋齿菌斑中增多,可与变异链球菌(Streptococcus mutans)协同构建更致密的生物膜,增强局部产酸和耐酸能力,促进牙釉质脱矿。
并且Selenomonas的影响不止于口腔,研究发现,Selenomonas noxia 与超重、肥胖相关;在类风湿关节炎和系统性红斑狼疮等慢性炎症性疾病中,也可观察到包括Selenomonas在内的疾病相关菌群富集。与此同时,在哮喘患者和自闭症谱系障碍患者中,观察到Selenomonas的相对丰度出现减少。
但是注意关联并不等于因果,本文将从月形单胞菌属(Selenomonas)的分类与形态、生长条件、人体定植特点、代谢能力及其与牙周炎、儿童龋齿等健康问题的关系出发,认识这类既普通又具有情境依赖性的微生物。
月形单胞菌属(Selenomonas)属于厚壁菌门下的Veillonellaceae(韦荣氏菌科)。是一类以严格厌氧、革兰阴性染色、弯曲/新月形、凹面丛生鞭毛和运动性为突出特征的细菌。它们可定植于动物瘤胃及人体口腔、胃肠道和呼吸道相关部位。
现有文献显示,该属并非可简单定义为“有害菌”或“益生菌”。其效应具有明显的:
✔ 物种特异性:如 S. noxia 与牙周炎、肥胖相关;S. sputigena 与儿童龋齿生物膜协同相关;
✔ 生态位特异性:龈下牙周袋、龈上牙菌斑、唾液、肠道和痰液中的作用可能不同;
✔ 群落依赖性:常作为条件致病菌,在单独存在时未必致病,但可在失衡微生态或与特定菌种协同时增强疾病表型;
1
分类与遗传信息
月形单胞菌属(Selenomonas)在分类学上属于厚壁菌门(Firmicutes)下的Veillonellaceae(韦荣氏菌科)。
注:有研究将Selenomonas等移至新建的 Selenomonadaceae 科下。但目前 NCBI Taxonomy 等数据库仍有沿用 Veillonellaceae 的情况,两版分类均在文献中被引用。
主要种包括:
Selenomonas noxia;
Selenomonas sputigena;
Selenomonas felix;
以及S. dianae、S. flueggei、S. infelix、S. artemidis等。
模式种:Selenomonas sputigena。
DNA G+C (mol%): 40–61。
2
细胞形态
•形态结构:细胞呈弯曲杆状、新月形或肾形,尺寸约 0.9–1.1 × 3.0–6.0 μm,两端圆润;不产生荚膜与芽孢。
doi: 10.1016/j.nmni.2019.100567.
•运动方式:在细胞凹面中央着生一束鞭毛(可达 16 根),呈线性排列,表现为典型的翻滚式运动。鞭毛驱动的运动可能有助于其在液体环境、龈沟液或生物膜表面迁移。
在龋齿模型中,S. sputigena 单独附着于牙面时保持运动性;与 S. mutans 共培养后,其可被后者产生的胞外α-葡聚糖基质捕获而失去运动性。葡聚糖水解酶降解该基质后,运动性恢复,表明这种限制是可逆的,并由生物膜基质介导。
•染色:革兰氏阴性。
3
生长环境
•专性厌氧
月形单胞菌属(Selenomonas)总体为专性厌氧菌,氧暴露会严重限制其生长和存活。因此,其主要生态位通常是氧分压较低的区域。
•温度
其最适生长温度为35–40℃,实验室常规培养通常设定在 37℃。最低生长温度约 20–30℃,最高生长温度约 45℃。
这一温度区间与其主要栖息环境(哺乳动物胃肠道、口腔等体温环境)相吻合。
•pH
月形单胞菌属的最适pH通常接近中性,为6.0–7.0;并且其具有一定耐酸性,可在pH 4.5–5.0的酸性环境中存活或生长,这可能有利于其在龋齿微环境和瘤胃等酸性生态位定植。
•不同来源菌株的营养生态差异
该属的代谢类型具有种间差异:
因此,不能将某一物种的培养条件或代谢能力直接推广至全属。
4
人群分布与定植特征
•口腔中的分布
月形单胞菌属(Selenomonas)可检出于:
来源:谷禾肠道菌群检测数据库
月形单胞菌属(Selenomonas)在牙周健康人群及谷禾口腔检测中通常检出量低或不可检出;随着牙龈炎症和牙周袋形成,其检出率及丰度增加。值得注意的是,即便在牙周炎位点,S. noxia 平均相对丰度通常仍较低,提示其可能不是“数量上占优势”的病原体,而可能通过特定代谢、生物膜或炎症效应参与疾病。
•年龄相关分布
影响因子:2.849
一项针对87名、7–17岁儿童和青少年的唾液qPCR研究发现S.noxia阳性率在不同年龄段间存在区别:
7–10岁——13.3%;
11–13岁——34.6%;
14–17岁——54.8%。
总体阳性率为34.4%(30/87),年龄组差异显著。这提示青春期阶段的激素变化、口腔卫生行为、饮食习惯、正畸治疗或牙周微环境变化,可能影响其获得和定植。
•牙周炎人群丰度高于牙周健康人群
在另一项成人研究中,III期重度牙周炎患者龈下S.noxia的检出率为53.4%(110/206),显著高于牙周健康者的20.8%(10/48)。其中,重度定植(每份样本≥106个细胞)的比例在重度牙周炎组为16.0%,而在牙周健康组仅为2.1%。总体而言,重度牙周炎组的 S. noxia 检出率约为健康组的2.6倍,重度定植比例约为7.6倍。
•胃肠道、呼吸道等其他部位
胃肠道:在人粪便宏基因组中检出率极低,但在部分肥胖人群中 S. noxia 可能随口腔-肠轴定植并参与纤维发酵。
呼吸道:健康人气道中低频存在;重度哮喘患者痰液中丰度显著下降,是非严重性哮喘与健康对照的潜在差异菌属。
5
代谢能力及影响
•发酵与短链脂肪酸产生
月形单胞菌属(Selenomonas)为化能有机营养型厌氧发酵菌,可发酵葡萄糖,并产生较高水平的乙酸、丙酸;可伴生少量乳酸、琥珀酸、H₂;是肠道/瘤胃重要的丙酸产生菌之一。
这些短链脂肪酸在肠道环境可能参与宿主—微生物代谢交流;但在牙周袋等局部高浓度、封闭性炎症环境中,可能具有细胞毒性或促进组织损伤的作用。
•产生硫化氢
S.noxia可产生较高水平的硫化氢(H₂S)。该代谢物具有:
•底物谱
Selenomonas可利用葡萄糖、甘露醇、蔗糖、乳酸、谷氨酸/天冬氨酸等。
注:部分研究提出 S. noxia 可能参与纤维素、膳食纤维或“难消化”碳水化合物的代谢,从而增加可获得能量,并与超重或肥胖相关。
6
抗菌药物敏感性
对S.noxia ATCC 43541的体外最低抑菌浓度(MIC)检测显示:
编辑
•解读与局限性
Selenomonas 在成熟生物膜中可能因基质屏障、低代谢状态和与其他菌共存而表现出较高“耐受性”;这与获得性遗传耐药并不完全相同。
临床牙周治疗不能仅根据单一菌种检出结果决定抗菌药物使用,应以机械清创、牙周临床评估和规范指南为基础。
7
与人体及其他菌群的互作
•与牙周组织和宿主炎症的关系
在牙周炎环境中,S. noxia 可在其他牙周相关厌氧菌释放的细胞因子、毒素及炎症产物存在的条件下生存。其可能通过以下途径参与病变:
然而,现有证据更支持其为牙周生态失衡中的候选参与者,而非已被单独证明的充分致病因子。
•与 Streptococcus mutans 的协同:儿童龋齿中的代表性机制
这是目前证据最完整的跨菌种互作之一。
互作过程:
互作后果:
•与其他菌群的关系
月形单胞菌属(Selenomonas)是一类主要定植于人体口腔、胃肠道等厌氧微环境的革兰阴性厌氧菌,其在健康状态下可作为复杂微生物群落的组成部分参与生态平衡。
然而,当局部微生态失衡、菌斑生物膜成熟或宿主易感性增加时,部分菌种可由共生成员转变为促进疾病发生的条件致病菌。例如,S. noxia 与牙周炎及肥胖相关表型存在关联;S. sputigena 则可与变异链球菌协同形成高致龋性生物膜,增强局部酸化和牙釉质脱矿。
月形单胞菌属在人体健康与疾病中的作用具有明显的情境依赖性,其致病潜能不仅取决于自身丰度,更与其所在生态位、微生物互作及宿主环境密切相关。下面让我们一起来了解,Selenomonas可能与哪些疾病的发生和发展存在相关性?
1
牙周炎
水平和相对丰度明显升高 ↑↑↑
编辑
影响因子:3.998
• Selenomonas在牙周炎中丰度明显增加
月形单胞菌属(Selenomonas)在牙周炎中升高是最一致的发现之一。Selenomonas sputigena是口腔厌氧菌,通常可见于唾液和龈下菌斑。在牙周健康状态下,其丰度相对较低;而在牙周炎,尤其是深牙周袋的龈下生物膜中,其检出水平和相对丰度明显升高。
既往研究也表明,S.noxia在牙周炎活动初期增多,并与进行性附着丧失相关。治疗后其水平仍较高者,可能更易出现疗效不佳或附着丧失继续进展。
严重牙周炎及牙周健康中Selenomonas的丰度水平
编辑
doi: 10.7759/cureus.83171.
•可能的作用机制
2
儿童龋齿
在龋齿儿童的牙菌斑中丰度显著升高 ↑↑↑
编辑
影响因子: 12.121
•S. sputigena 在龋齿儿童中丰度和转录活性均显著升高
在一项纳入416名学龄前儿童的研究中,研究者对龈上牙菌斑进行了宏基因组和宏转录组分析:发现队列300人、独立验证队列116人。Selenomonas sputigena在龋齿儿童的牙菌斑中丰度和转录活性均显著升高,并且这一关联在发现与验证队列中均得到支持。
•S.sputigena并非独立致龋菌,而是协同增强菌
S.sputigena 单独存在时,虽然能够在牙面定植、利用糖并产酸,却难以高效形成成熟的牙面生物膜;动物实验中,单独接种该菌也未明显增加龋损。其更准确的定位是条件致病共生菌:在变异链球菌存在的条件下,通过协同作用显著放大生物膜的致龋能力。
口腔微生物物种与龋齿的关联
编辑
doi: 10.1038/s41467-023-38346-3.
•增强糖代谢、产酸和耐酸性
龋齿相关菌斑的转录组显示,糖酵解等与产酸有关的通路上调,S. sputigena 是相关功能菌之一。体外实验进一步表明:
–S. sputigena 能利用蔗糖或葡萄糖产酸,也能在酸性环境中生长;
-与 S. mutans 共培养时,混合菌群的平均质子产生速率最高,且pH下降最快;
-两菌混合培养能在初始pH 5.2条件下生长,48小时后终末pH可降至约 3.9,低于 S. mutans 单独培养或其他混合菌组合;
-混合生物膜—牙釉质界面可形成pH<5.5的局部强酸区,达到促进牙釉质脱矿的条件。
混合培养中的代谢峰值仍主要由 S. mutans 驱动。因此,S. sputigena 的关键贡献并不只是自身产酸,更在于增强整体生物膜的局部酸化能力和耐酸性。
•加重牙釉质脱矿与龋损
在离体人牙釉质模型中,S. sputigena—S. mutans 混合生物膜造成的牙釉质表面粗糙度、矿物质丢失和酸蚀深度均显著高于S. mutans 单菌生物膜。若敲除 S. mutans 的 gtfB/gtfC 基因、阻断α-葡聚糖合成,或使用葡聚糖水解酶破坏胞外基质,则蜂窝状混合结构无法建立,局部强酸区也随之消失。
在啮齿动物模型中,S. sputigena 单独感染不能显著诱发龋齿;但与 S. mutans联合感染会显著增加总龋损和重度龋损,出现更广泛的牙釉质破坏和龋洞。
// 小结
儿童龋齿患者龈上牙菌斑中,Selenomonas sputigena 的丰度和活性升高。它本身不是充分致龋菌,却能借助 S. mutans 产生的α-葡聚糖基质实现牙面富集、运动性固定和局部增殖,进而形成包绕链球菌微菌落的蜂窝状三维结构。该结构促进糖代谢、增强产酸和耐酸能力,形成持续的低pH微环境,最终加重牙釉质脱矿及儿童龋齿严重程度。
3
超重与肥胖
•Selenomonas在超重和肥胖人群中检出率更高
编辑
影响因子:3.018
该研究通过qPCR检测122份儿童与成人唾液样本,发现牙周病原体(Selenomonas noxia)在超重和肥胖者中的检出率显著高于正常BMI者,提示其与体重异常存在关联。
编辑
S. noxia 在超重和肥胖者中更常检出:43例阳性者中,37例(86%)来自超重或肥胖组。
• 增加膳食能量获取的潜力
文献提出,S. noxia 可能具有降解纤维素及其他人体通常难以消化的膳食纤维的能力。若这种代谢功能在体内发挥作用,可能将原本难以利用的复杂碳水化合物转化为可吸收的代谢产物,从而提高单位食物摄入的能量回收效率,并可能促进长期体重增加。
•与牙周炎及低度炎症的共同关联
S. noxia 被视为牙周炎相关菌。超重和肥胖本身与牙周炎风险及慢性低度炎症有关;局部牙周炎症可能改变龈下或唾液微生态,反过来使 S. noxia 更易定植。因此,二者可能存在双向关系:肥胖相关代谢/炎症环境促进该菌富集,而该菌及相关牙周微生态失衡又可能参与炎症负担。
4
自身免疫相关疾病与炎症
编辑
影响因子:4.914
•持续炎症可使类风湿关节炎患者中S. noxia丰度升高
研究显示,在类风湿关节炎(RA)动物模型中,S.noxia、Parvimonas micra和Veillonella parvula水平升高。另有人体研究报告,即使RA患者没有临床牙周炎,其口腔菌群中仍可见S. noxia和S. sputigena等牙周相关菌富集。
RA相关的持续炎症可使牙周组织中TNF-α、IL-1、IL-6和IL-17升高,改变局部营养供给与低氧环境,进而有利于厌氧、疾病相关菌的定植。RA抗炎治疗后,口腔菌群失调可部分逆转,支持“宿主炎症驱动菌群变化”的解释。
全身健康状况对牙周组织和相关微生物群的影响
编辑
doi: 10.1177/0022034518805739.
•系统性红斑狼疮患者龈下S. noxia升高 ↑↑↑
系统性红斑狼疮(SLE)患者龈下菌群中S. noxia升高,且可见于牙周临床健康位点;同时,健康相关菌如Capnocytophaga、Rothia和Streptococcus减少。SLE患者通常还表现为更高的细菌负荷、更低的微生物多样性,以及疾病相关菌比例升高。
SLE的持续炎症、IL-6、IL-17和IL-33升高,以及口干或唾液减少等口腔环境改变,可能共同促进S.noxia等厌氧菌富集。炎症造成组织降解后释放的营养底物也可进一步支持这些菌的生长,形成“炎症促进菌群失调—失调菌群放大牙周炎症”的循环。
5
糖尿病相关
编辑
影响因子:3.742
•糖尿病患者中与S.noxia相关的牙周免疫反应增强
该研究未直接测定口腔中S. noxia的丰度,而是分析了8,153名≥40岁成人血清中针对S. noxia及另外6种牙周微生物的IgG抗体(“红—绿簇”)。最长27年随访显示,红—绿簇抗体水平较高者的糖尿病相关死亡风险增加86%。
因此,该结果提示长期牙周微生物暴露或增强的宿主免疫反应与风险升高相关,并不代表糖尿病患者口腔中S. noxia菌量增加,也不能证明该菌单独导致风险升高。
6
哮喘
在哮喘患者中丰度降低 ↓↓↓
编辑
影响因子:8.706
•Selenomonas随哮喘的严重程度出现递减趋势
研究通过对155名受试者(31名非哮喘对照、47名非重度哮喘、77名重度哮喘)的气道菌群分析,发现 Selenomonas 的丰度呈现出与疾病状态密切相关的递减趋势:
哮喘患者总体Selenomonas低于健康人:与非哮喘对照组相比,哮喘组气道中 Selenomonas 的丰度显著降低(ANCOM 方法分析显示显著差异)。
随哮喘严重程度加重而递减:在按严重程度分层比较中,重度哮喘患者气道中 Selenomonas 的相对丰度显著低于非重度哮喘患者及非哮喘对照组(ANOVA 及 OMiAT 方法均证实,校正后 p=0.011)。疾病越严重,其缺失越明显。
与菌群多样性正相关:在哮喘患者体内,Selenomonas 的丰度与 Alpha 多样性指数(Chao1 指数、Shannon 指数)呈显著正相关,但在非哮喘对照组中无此关联,提示其在维持哮喘气道微生态稳定中可能具有特定地位。
•可能通过调节TH2免疫来缓解哮喘炎症反应
减轻气道高反应性(AHR)与炎症细胞浸润:在小鼠哮喘模型中,致敏期经鼻给予Selenomonas sputigena(人痰液中占主导的 OTU,占比48%)处理后可:
-显著降低气道高反应性;
-减少支气管肺泡灌洗液(BALF)中的炎性细胞总数。
抑制2型炎症反应:流式细胞术分析显示,Selenomonas 处理显著降低了肺组织中分泌 IL-5 和 IL-13 的 TH2 细胞群比例。IL-5 与嗜酸性粒细胞活化、IL-13 与黏液高分泌及气道重塑密切相关,说明该菌可能通过调节 TH2 免疫偏向来缓解哮喘的 2 型炎症表型。
复杂的菌群互作作用:哮喘组(尤其是重度组)中存在以 Selenomonas 为中心的更复杂微生物关联;重度哮喘中显著负相关(竞争/抑制)的菌对数量增加。
这些提示 Selenomonas 可能在气道微生态网络中处于关键节点,其减少可能破坏菌群稳态,间接促进炎症环境。
7
自闭症谱系障碍 ↓↓↓
编辑
影响因子:3.998
•自闭症谱系障碍中Selenomonas丰度降低 ↓↓↓
该研究采用16S rRNA测序,比较了32名ASD儿童与27名年龄、性别和BMI匹配健康儿童的唾液及龈上牙菌斑,共111份样本。
ASD儿童牙菌斑中的 Selenomonas 相对丰度显著降低。并且 Selenomonas 的降低并非孤立现象,而是ASD儿童口腔菌群失调的一部分:
•ASD组的牙菌斑多样性、丰富度和均匀度降低;
•健康对照中相对富集的 Prevotella、Selenomonas、Actinomyces、Porphyromonas 和 Fusobacterium 在ASD中减少;
•牙菌斑中的 Streptococcus 增加,唾液中的 Haemophilus 增加;
因此,可以将 Selenomonas 视为ASD相关口腔生态失衡中减少的共生菌成员之一,但不能说Selenomonas减少是ASD的病因、后果或症状严重度的直接决定因素。
现有证据显示,Selenomonas. noxia在牙周炎、超重与肥胖及部分慢性炎症相关状态中更常被检出;Selenomonas. sputigena 则可与变异链球菌协同形成高致龋性生物膜,放大局部酸化和牙釉质脱矿造成龋齿。
另一方面,在重度哮喘气道和自闭症儿童牙菌斑中,Selenomonas 的减少又与菌群多样性下降或生态失衡并存。这些看似不同的结果恰恰说明:丰度升高或降低本身并不等于致病或保护,关键在于它处于怎样的生态环境、与哪些微生物互作,以及宿主身体处于何种状态。
因此,面对与Selenomonas有关的研究,更合理的态度不是“消灭某一种菌”,而是重视整体口腔和微生态健康:坚持有效刷牙与清洁牙缝、定期进行口腔菌群检测、口腔健康检查和牙周评估、减少高糖饮食,并同步管理体重、血糖及慢性炎症等问题。对于已经存在牙周病或反复龋齿的人群,规范的机械清创和个体化临床治疗仍是基础,不宜仅凭口腔菌种检测结果自行使用抗菌药物。
未来,还需要更大规模的纵向人群研究,以及物种和功能层面的实验,进一步厘清Selenomonas究竟是疾病进程的参与者、微生态失衡的标志,还是在特定条件下具有调节作用的关键节点。认识这类“小众菌”的价值,正在于帮助我们从一颗牙、一个菌斑,看到口腔微生态与全身健康之间更复杂也更值得重视的联系。
主要参考文献
Hespell, R.B., Paster, B.J., Dewhirst, F.E. (2006). The Genus Selenomonas . In: Dworkin, M., Falkow, S., Rosenberg, E., Schleifer, KH., Stackebrandt, E. (eds) The Prokaryotes. Springer, New York, NY.
Drescher J, Schlafer S, Schaudinn C, Riep B, Neumann K, Friedmann A, Petrich A, Göbel UB, Moter A. Molecular epidemiology and spatial distribution of Selenomonas spp. in subgingival biofilms. Eur J Oral Sci. 2010 Oct;118(5):466-74.
Cho H, Ren Z, Divaris K, Roach J, Lin BM, Liu C, Azcarate-Peril MA, Simancas-Pallares MA, Shrestha P, Orlenko A, Ginnis J, North KE, Zandona AGF, Ribeiro AA, Wu D, Koo H. Selenomonas sputigena acts as a pathobiont mediating spatial structure and biofilm virulence in early childhood caries. Nat Commun. 2023 May 22;14(1):2919.
McDaniel J, McDaniel S, Samiano BJ, Marrujo M, Kingsley K, Howard KM. Microbial Screening Reveals Oral Site-Specific Locations of the Periodontal Pathogen Selenomonas noxia. Curr Issues Mol Biol. 2021 Jun 12;43(1):353-364.
Williams A, Porter J, Kingsley K, Howard KM. Higher Prevalence of the Periodontal Pathogen Selenomonas noxia among Pediatric and Adult Patients May Be Associated with Overweight and Obesity. Pathogens. 2024 Apr 19;13(4):338.
Nagpal D, Prakash S, Bhat KG, Singh G. Detection and comparison of Selenomonas sputigena in subgingival biofilms in chronic and aggressive periodontitis patients. J Indian Soc Periodontol. 2016 May-Jun;20(3):286-91.
Qiao Y, Wu M, Feng Y, Zhou Z, Chen L, Chen F. Alterations of oral microbiota distinguish children with autism spectrum disorders from healthy controls. Sci Rep. 2018 Jan 25;8(1):1597.
Rams TE, Hawley CE, Whitaker EJ. Subgingival Prevalence and Antibiotic Susceptibility of Selenomonas noxia. Cureus. 2025 Apr 29;17(4):e83171.
Hawkes CG, Carroll BO, Moylan AD, Stiker MEJ, Wang T, Serrano MG, Ridlon JM, Miller DP. Genomic and phenotypic insights into the novel species Selenomonas lamontii type strain ATCC 33150, currently described as Selenomonas sputigena. Microbiol Spectr. 2026 Jul 7;14(7):e0034126.
Deng ZL, Szafrański SP, Jarek M, Bhuju S, Wagner-Döbler I. Dysbiosis in chronic periodontitis: Key microbial players and interactions with the human host. Sci Rep. 2017 Jun 16;7(1):3703.
Hendricks K, Hatch T, Kingsley K, Howard KM. Screening for Selenomonas noxia in a Pediatric and Adolescent Patient Population Reveals Differential Oral Prevalence across Age Groups. Int J Environ Res Public Health. 2024 Mar 23;21(4):391.
Graves DT, Corrêa JD, Silva TA. The Oral Microbiota Is Modified by Systemic Diseases. J Dent Res. 2019 Feb;98(2):148-156.
Hawkes CG, Hinson AN, Vashishta A, Read CB, Carlyon JA, Lamont RJ, Uriarte SM, Miller DP. Selenomonas sputigena Interactions with Gingival Epithelial Cells That Promote Inflammation. Infect Immun. 2023 Feb 16;91(2):e0031922.
Kuete E, Mbogning Fonkou MD, Mekhalif F, Anani H, Baudoin JP, Raoult D, Bou Khalil JY. Selenomonas felix sp. nov., a new bacterium isolated from human sputum. New Microbes New Infect. 2019 May 29;31:100567.
Kim YC, Choi S, Sohn KH, Bang JY, Kim Y, Jung JW, Kim HY, Park J, Kim K, Kang MG, Yang MS, Kim S, Kim SH, Choi JH, Park HJ, Lee SM, Kim SH, Park JW, Lee JM, Cho SH, Won S, Yi H, Kang HR. Selenomonas: A marker of asthma severity with the potential therapeutic effect. Allergy. 2022 Jan;77(1):317-320.
Merchant AT, Vidanapathirana N, Yi F, Celuch O, Zhong Z, Jin Q, Zhang J. Association between groups of immunoglobulin G antibodies against periodontal microorganisms and diabetes-related mortality. J Periodontol. 2022 Jul;93(7):1083-1092.
谷禾健康
你有没有过这样的经历:明明认真刷了牙,嘴里却还是有异味?问题可能不只在牙齿和牙缝,也可能藏在舌头后部厚厚的舌苔里。
今天要介绍的这个菌——Solobacterium moore,它是口臭人群口腔微生态中的“常住居民”,尤其喜欢聚集在舌背后部、舌苔深层,分类学上属于厚壁菌门(Firmicutes)下的丹毒丝菌科,是口臭的重要帮凶。有研显示100%的口臭患者舌背可检出,而无口臭者仅约14%检出。
S. moorei 擅于在低氧/缺氧环境中分解唾液和黏液中的糖蛋白,并将其中的含硫成分转化为硫化氢、甲硫醇等挥发性硫化物。这些物质,正是口臭中最典型、最难闻的气味来源。
而它受到关注并不止于诱发口臭。该菌也存在于肠道中, 最早于2000年从健康人粪便中分离,定植于结肠,在正常肠道菌群中占比不高,但在特定病理状态(结直肠癌、肥胖、便秘)丰度可升高,暗示该口源菌可能与这些疾病进展存在一定关联,甚至因果。部分研究还提示,它或许能影响肿瘤细胞的生长。不过目前尚没有直接的证据证明它会直接导致结直肠癌,相关机制仍在研究之中。
尤其,当口腔或肠道屏障受损、免疫功能下降时,这种原本与人体和平共处的细菌,还可能转变为机会性病原体,参与菌血症、深部脓肿和术后伤口感染等问题,尤其是在恶性肿瘤或免疫抑制人群中。
个人健康的角度讲,从舌苔深处的异味,到肠道疾病和少见感染,S. moorei是一个不容忽视的“信号员”:它未必是疾病的直接元凶,却可能提示发现自己口气不佳时,别只盯着牙齿,也看看舌头后部。那里,或许正是问题的起点。
1
分类及细胞形态
Solobacterium moorei 在分类学上属于厚壁菌门(Firmicutes)下的丹毒丝菌科(Erysipelotrichaceae)中的Solobacterium属。
• 菌体形状:短杆状至球杆状,尺寸约0.2×(0.4–0.7)µm至0.4–0.7×2.0µm,常单个、成对或短链排列。
• 染色特性:革兰氏阳性(但部分菌株因细胞壁结构或脱色过度可呈革兰可变)。
• 特殊结构:无芽胞、无鞭毛、不运动,不形成内生孢子。
•其他结构:含有新型的B型胞壁肽聚糖(murein)。在临床分离株中可见明显的多形性,部分菌体膨大,不同于均匀的Eggerthella lenta短杆,这是镜检鉴别的线索之一。
• 遗传特征(以 JCM 10645T 为例)
染色体类型:单条线性染色体;
基因组大小:约 2,615,268 bp;
GC 含量:约 37.2%;
基因组编码内容:包含 2,599 个蛋白编码基因。
2
生长环境
• 氧需求:专性厌氧,对氧极敏感,好氧及含CO₂环境不生长。(仅在无氧环境(如含80% N₂、10% H₂、10% CO₂的厌氧罐)中生长)
• 温度:嗜温菌,最适生长温度37℃。
• 菌落形态:生长缓慢、菌落较小;在厌氧血琼脂上形成直径约0.5–1mm的灰白色、圆形、凸起、表面光滑、不透明、非溶血的小型菌落。
3
人群分布与定植特征
S. moorei是人类黏膜表面的内源性共生菌,主要定植于:
• 口腔:舌背后部(舌苔深层)是其最经典的定植位,也见于龈上/龈下菌斑、邻面菌斑、根管感染物、牙周袋及口腔黏膜。
研究显示100%的口臭患者舌背可检出,而无口臭者仅约14%检出。
• 胃肠道/粪便来源:最早于2000年从健康人粪便中分离,定植于结肠,在正常肠道菌群中占比不高,但在特定病理状态(结直肠癌、肥胖、便秘)丰度可升高。
人类宏基因组中S. moorei序列的相对丰度
doi: 10.3390/microorganisms9061229.
• 其他部位:偶见于阴道、皮肤正常菌群,但丰度极低;在静脉药瘾者(IVDU)腹股沟区、伤口等处检出的S. moorei通常源于口腔菌群移位(如舔针行为)。
• 人口学差异:研究发现男性检出率高于女性;种族上非裔美国人>西班牙裔>白种人>亚裔(但亚裔样本量少)。
并且在肥胖、结直肠癌、难治性牙周炎、口臭人群中相对丰度显著升高。
4
代谢能力与产毒潜力
• 核心功能:挥发性硫化物(VSC)生成能力(口臭的关键)
口臭主要归因于挥发性硫化合物 (VSC)。而Solobacterium moorei可以在口腔龈下深袋等低氧生态位中通过其与含硫底物代谢(尤其与半胱氨酸→H₂S/VSC通路相关的酶学能力)参与生成挥发性硫化物(VSC),因此其在牙周炎合并口臭患者的龈下菌斑中常被检测到且其丰度与H₂S/甲硫醇等VSC水平呈一致的正相关。
S.moorei为化能异养菌,通过发酵获取能量,主要代谢特征如下:
• 糖类发酵:可发酵葡萄糖、半乳糖、果糖、核糖、麦芽糖产酸(不产气);对蔗糖、乳糖、甘露醇、木糖等通常为阴性。
• 关键酶:
β-半乳糖苷酶(β-galactosidase)阳性:可降解唾液/黏液糖蛋白的糖链,释放半乳糖及含硫氨基酸前体,是产臭与协助其他蛋白水解菌获取底物的关键。
α-葡萄糖苷酶、α-半乳糖苷酶、酸性磷酸酶、亮氨酸芳酰胺酶、萘酚磷酸水解酶呈阳性。
脲酶、β-葡萄糖苷酶、明胶水解、多为阴性,但体外能直接代谢L-半胱氨酸产H₂S。
• 发酵产物:葡萄糖发酵主要产乙酸、乳酸、丁酸,并伴随少量丙酮酸。
• 生物膜形成:Solobacterium moorei 能表达疏水性黏附素(adhesins),从而黏附于舌鳞状上皮细胞及羟基磷灰石表面,形成单种或多种生物膜,并增强其在厌氧生态位(舌苔深层、牙周袋)的定植与耐药。
同时其还表达 CnaB 型结构域蛋白,可与舌鳞状上皮细胞、羟基磷灰石以及结直肠癌细胞表面的整合素 α2/β1结合,进一步促进细菌定植并可能参与免疫逃逸。
5
耐药性
在感染回顾与病例研究中,多数分离株对常用厌氧抗生素总体敏感。
• 通常敏感
β-内酰胺类:青霉素(MIC 常 ≤0.06 µg/mL)、氨苄西林、阿莫西林-克拉维酸、哌拉西林-他唑巴坦、头孢西丁/三代四代头孢(部分)。
碳青霉烯类:美罗培南、亚胺培南(MIC <0.1 µg/mL)。
林可酰胺类:克林霉素(多数敏感,少数报道约 4.3% 耐药)。
其他:万古霉素、替加环素、甲硝唑(注意:个别临床株报道对甲硝唑耐药,MIC >256 µg/mL,需警惕)、莫西沙星。
• 天然耐药/不敏感
氨基糖苷类:庆大霉素、卡那霉素(厌氧环境下摄取障碍 + 固有耐药)。
利福平、萘啶酸、复方新诺明(TMP-SMX)及部分氟喹诺酮类(如左氧氟沙星敏感性不定)。
临床提示:由于生长缓慢且表型鉴定困难,若疑似S.moorei 感染(菌血症、深部脓肿)而甲硝唑治疗无效时,应复核药敏或换用青霉素类/碳青霉烯类。
6
与其他菌群的相互作用
• 协同导致口臭
S. moorei 的 β-半乳糖苷酶解聚糖 → 暴露肽链供 P. gingivalis/Prevotella利用 → 协同增加挥发性硫化合物 (VSC);其生物膜结构利于产黑色素普雷沃菌(prevotella melaninogenica)等定居。
可能机制与其β-半乳糖苷酶活性提供可利用营养底物有关,从而提升蛋白分解/代谢型致病菌的营养可达性。
• 混合感染
菌血症/伤口感染中常与 Actinomyces meyeri、Fusobacterium spp.、Porphyromonas uenonis、Eikenella corrodens等混合检出,反映其源于内源性多菌生态位的移位。
• 与Prevotella intermedia的关系
Solobacterium moorei与Prevotella intermedia在牙周炎合并口臭患者的龈下菌群中呈现“共现但生态位/功能侧重不同”的关系:两者在同一队列中均可稳定检出(非手术牙周治疗前后 S. moorei 仍持续存在),但 P. intermedia 的检出/丰度更高。
S.moorei的丰度与挥发性硫化物关键组分硫化氢(H₂S)和甲硫醇(CH₃SH)浓度呈强正相关;相对地,P. intermedia 与更深的牙周袋(更严重的局部低氧/炎症生态位)关联更强,反映其更贴近“牙周破坏程度/生态位”,而非直接的 VSC 输出。
总体而言,它们更像在同一牙周厌氧生物膜内分工:S.moorei 偏向挥发性硫化物产生,P.intermedia 偏向深袋与牙周炎严重度相关的生态位。
一句话总结
Solobacterium moorei是一种专性厌氧、无芽胞的革兰阳性多形杆菌,常定植于人类舌背、胃肠道等黏膜表面,依靠β-半乳糖苷酶与半胱氨酸脱硫参与挥发性硫化物产生,是口源性口臭的关键关联菌。
它对青霉素类、碳青霉烯类、克林霉素、甲硝唑普遍敏感,对氨基糖苷类、利福平天然耐药。在免疫健全宿主多为低丰度共生,但在肿瘤、免疫低下、黏膜屏障破坏时可移位致菌血症、脓肿、伤口感染。
口臭本质上是口腔内挥发性气味分子在呼气中的富集与逸散。大量研究与临床观察都指向:口臭的主要来源往往是口腔内厌氧微生物在低氧、蛋白丰富的生物膜生态位中进行含硫代谢,生成一组以挥发性硫化物(VSCs)为核心的恶臭分子;其中典型代表包括H₂S(硫化氢)与CH₃SH(甲硫醇)等。
Solobacterium moorei被反复发现与口臭相关,让我们一起来进一步了解下,它究竟是通过怎样的过程或机制一步步参与其中,最终是如何导致口臭发生、形成的。
1
先定植:为何S.moorei特别适合“产味生态位”
S. moorei是专性厌氧菌,其天然生存优势对应于口腔中典型的低氧区域:例如舌苔背后部、龈下深牙周袋及相关的厌氧牙周/根管感染灶。
在这些部位,氧化还原电位低、伴随炎症渗出与组织蛋白降解,形成富含含硫氨基酸与肽类(尤其是半胱氨酸相关底物)的环境;这类“低氧 + 蛋白/含硫底物丰富”的生态位,恰好为 S. moorei 参与含硫代谢提供了前提条件。
▸ 口臭患者中S.moorei的检出率和丰度更高
从临床证据看,多项研究均提示S.moorei与口臭高度同向:在牙科/口臭门诊的大样本研究中,其在口臭患者中的检出率显著更高,且在舌部与唾液样本中的检出与嗅觉评分及 VSC 相关指标呈显著相关。在193例口臭门诊患者中,S.moorei的舌苔与唾液丰度与H₂S、CH₃SH、二甲基硫及总挥发性硫化物均显著相关。
另一项纳入 57 位成人的研究中,S. moorei 对口臭检测表现出较高的敏感性与特异性,表明其并非“偶然检出”,而更可能是与口臭生物学基础紧密联系的关键参与者。
2
代谢:把“含硫底物”转成“挥发性硫化物”
真正将 S. moorei 与口臭联系起来的关键证据,是其可定量产生挥发性硫化物(VSC),且其产物与含硫底物(尤其半胱氨酸)存在可检测的依赖关系。
▸ S.moorei厌氧代谢产生H₂S与CH₃SH刺激性气体
研究同时指出,当培养体系中加入半胱氨酸等与含硫代谢相关的底物时,VSC 生成与底物之间的关联会更清晰,支持“含硫底物→产硫挥发物”的机制方向。
因此,在口腔中更贴近真实情境的解释是:当舌苔与龈下生物膜形成厌氧环境并伴随蛋白降解时,S.moorei 获得含硫氨基酸/肽类底物后,在厌氧代谢中产生或促进 H₂S 与 CH₃SH 等 VSC 的形成;这些小分子气味强烈且挥发性高,能够从局部口腔逸散到呼气中,进而直接导致口臭。
3
对口臭“气味谱”的影响:与H₂S/CH₃SH的相关性
仅仅“存在于厌氧菌群”不足以说明致臭机制;更关键的是其丰度是否能随口臭的核心化学指标一起变化。
▸ S.moorei的丰度与硫化氢等的浓度显著相关
牙周炎合并口臭患者的 qPCR 临床研究显示,S.moorei 在治疗前后均可检出,并且其丰度与 H₂S 和 CH₃SH 浓度呈强正相关。
当其在龈下/舌相关生态位更高时,VSC 水平也更高;反之,口腔生态干预导致 VSC 下降时,S.moorei相关指标的变化趋势同样更易被观察到。
4
在生物膜中:常与其他致臭菌并存
口臭与牙周疾病通常并非单一菌种造成,而是多种厌氧菌在同一低氧、蛋白丰富的微环境中共同构建生物膜并分工合作。
▸ 与P. intermedia可协作导致牙周疾病
就S.moorei而言,它常与牙周炎相关厌氧菌并存。以 Prevotella intermedia 为例:两者在患者龈下菌群中均能稳定检出,但“生态位与功能侧重点”不同——P. intermedia 更偏向与更深牙周袋(更严重的低氧/炎症生态位)关联;而 S. moorei 更突出地与挥发性硫化物(尤其 H₂S 与 CH₃SH)相关。
基于此,可以推断 S. moorei 在该厌氧生物膜网络中更可能承担“含硫气味输出”的功能模块,而其他菌种则可能通过促进炎症渗出、改变底物供给或维持深袋生态位的稳定性,间接为其产味代谢创造条件。
5
遗传与分子层面的“可信机制底座”
从基因组层面来看,S. moorei 的完整基因组资源为其代谢潜力提供了依据;已有研究通过基因组同源性分析提示,其可能具备与含硫代谢(包括与产氢硫化物相关的关键酶同源物)相匹配的遗传基础。
该遗传潜力与体外“半胱氨酸相关的 VSC 生成”以及临床“与 H₂S/CH₃SH 浓度的正相关”相互吻合,使其在口臭中的作用更符合“遗传潜力—代谢产物—临床气味指标”的一致框架,而不只是检出相关。
S. moorei 在口臭中的“因果链”可概括为
1.定植/持续:在口腔的低氧、蛋白丰富生态位(舌苔深层、龈下深袋、坏死/厌氧感染灶)中存活并与其他厌氧菌共同构建生物膜;
2.底物驱动:从组织分解产物与炎症渗出中获得含硫底物,尤其与半胱氨酸相关的含硫代谢底物更紧密;
3.气味输出:在厌氧代谢中参与生成/促进 H₂S 与 CH₃SH 等挥发性硫化物;
4.释放造成口臭:这些挥发性小分子从生物膜局部逸散到呼气中,从而产生口臭;
5.维持与复发:其在治疗后仍可能残留或在生态位恢复时重新占据功能位置,使口臭呈持续或复发倾向。
在前文中,我们介绍了Solobacterium moorei与口臭显著相关,并且与“口臭关键气味分子(尤其 H₂S/CH₃SH)丰度同向变化”。
它具备“在特定厌氧、富底物环境中定植并驱动下游效应”的特征,这一思路也自然延伸到口腔之外的其他疾病研究中:当出现类似的炎症放大、屏障易损或底物富集条件时,S. moorei 可能不只是相关伴随者,而是推动疾病进展的“功能型参与者”。接下来,我们将沿着“口腔—肠道”脉络梳理 S. moorei 在其他疾病中的可能角色与机制。
1
腺瘤性息肉(AP):可能是炎症/屏障破坏相关的促病菌
影响因子:4.124
▸ S. moorei富集并与炎症、肠屏障受损同向
该研究发现,S. moorei在腺瘤性息肉(AP)患者的息肉组织以及粪便样本中富集。
与炎症标志物正相关:其丰度与 DAO、血清 TNF-α 等炎症相关指标呈显著正相关;与 抗炎因子 IL-4、IL-10呈负相关。
提示肠屏障功能受损:AP 患者血清 DAO、D-LA(肠通透性相关指标)升高,并伴随促炎因子上调、抗炎因子下调;S. moorei 的富集与这一表型相伴。
▸ S. moorei影响腺瘤性息肉的可能机制
S. moorei 定植/富集 → 炎症与屏障破坏 → 异型增生与增殖加速(AP进展),其关键环节包括:
①通过 H₂S 与炎症通路放大促炎因子
-研究指出 结肠组织 H₂S 含量在 S. moorei 组升高;
-同时 NF-κB 通路激活,促炎因子上升、抗炎因子下降。
②破坏肠屏障完整性,形成“易侵入/易放大炎症”的环境
-紧密连接蛋白(ZO-1、occludin、claudin-1)与 E-cadherin 下调,
-导致通透性增加、黏膜层与杯状细胞受损,从而进一步促炎并促进病变扩展。
③抑制免疫稳态并增强致增殖信号
-CD4+ / CD8+ 相关增殖受抑;
-Wnt/β-catenin 相关促增殖蛋白(β-catenin、cyclin D1)上调,促进异常细胞增殖与病灶进展。
2
与结直肠癌(CRC)的关联
编辑
影响因子:4.858
▸ 在结直肠癌患者中富集且与分期相关
在结直肠癌(CRC)患者的粪便中,Solobacterium moorei丰度升高,且与 CRC 肿瘤分期呈显著正相关。并且在 CRC 患者的肿瘤组织中,S. moorei 的丰度也显著更高,并同样与分期相关。
在多个CRC小鼠模型中,菌群耗竭后给予S.moorei,可观察到:
–肿瘤数目与体积增加;
-组织学表现更严重的异型增生/病灶;
-细胞实验中 S. moorei 对 CRC 细胞黏附更具偏向性(相较于正常结肠上皮细胞);
–促进 CRC 细胞增殖与克隆形成;
–抑制凋亡(对照菌如 E. coli 的效果不明显)。
▸ 机制A:促炎 + 破坏肠道屏障(推动息肉进展、为癌变创造条件)
S. moorei 可通过多环节加速病变:
–促进促炎因子上调:如 TNF-α、IL-6、IL-1β;并伴随抗炎因子(IL-4、IL-10)下降;
–激活 NF-κB 相关通路:与慢性低度炎症相吻合;
–破坏肠道屏障完整性:肠通透性指标上升、紧密连接/黏附连接相关蛋白下调。
-与H₂S相关:组织中 H₂S 含量升高,被认为与促炎放大、屏障破坏有关。
S.moorei介导结直肠癌进展的模拟机制
编辑
doi: 10.7150/ijbs.102742.
▸ 机制B:黏附肿瘤细胞并触发致癌信号轴(直接促进肿瘤细胞生长)
在结直肠癌(CRC)机制研究中,证据更偏向“靶向信号通路”:
–S.moorei 与 CRC 细胞发生特异性相互作用:其细胞壁蛋白可与 CRC 细胞表面的受体整合素 α2/β1结合;
-受体结合后,进一步通过FAK 磷酸化启动下游信号:PI3K-AKT-mTOR-C-myc 通路被激活;
相应的功能后果是:肿瘤细胞增殖相关分子上调(如 PCNA、Cyclin D1、Bcl-2 等)、凋亡相关通路受抑;
更关键的是:阻断整合素 α2/β1(RGD 肽或 siRNA 等干预)可消除 S. moorei 介导的促癌效应(体内体外均一致)。
S. moorei在CRC中富集,并与炎症放大、肠屏障破坏(NF-κB、H₂S 等)有关;同时它能黏附 CRC 细胞并通过整合素 α2/β1-FAK 激活 PI3K-AKT-mTOR-C-myc 信号,从而促进细胞增殖、抑制凋亡,最终加速从腺瘤/异型增生走向 CRC。
3
牙周病相关疾病(牙龈炎/牙周炎)
▸ 证据要点
综述性文献指出,S.moorei 与牙周炎相关厌氧菌群常共同出现,并在口臭与牙周指标之间观察到相关性。
口臭门诊队列中,S.moorei 的存在与牙周指标(牙龈炎/牙周炎、口腔卫生等)显著相关。
▸ 可能机制
4
牙源性/口腔感染
研究发现,S. moorei 除口臭外,也被报道分离自多种与口腔相关的感染类型,例如:
–根管感染、根尖周围病变、感染根管;
-牙槽脓肿;
-难治性牙周炎的龈下斑块、局部侵袭性牙周炎。
注:目前“口腔外侵入性感染”相对少见,但仍可见与口腔灶相关的病例叙述。
▸ 可能机制
S. moorei 被描述为机会性病原体,可在牙源性感染灶中出现。
口腔灶 → 进展性侵入:口臭相关细菌的VSC生成被提出可能与口腔黏膜通透性增加有关,从而为细菌进入循环提供条件;病例叙述中常提示感染源与口腔灶相关。
5
菌血症与伤口感染
虽然S.moorei多来自人类粪便并可见于口腔相关微生物群,但在临床上应视为机会性病原体,可能导致严重感染。
除口腔外的病例类型主要包括:血流感染(如菌血症/败血症)与手术伤口感染。这些病例常与恶性肿瘤、免疫抑制状态及其他易感因素相关(例如静脉药物滥用等)。
▸ 可能机制
-机会性侵入与基础宿主易感:文献给出的临床特征提示免疫受损人群更易发生菌血症。
挥发性硫化合物 (VSC)与黏膜通透性/炎症环境:口臭相关细菌产生的VSC(高浓度时可能增加口腔黏膜通透性)被作为解释菌血症潜在桥梁之一(与“口腔灶→侵入”这一临床观察相呼应)。
混合厌氧感染的协同:也有病例与研究提示在混合厌氧感染中可见 S. moorei,并提出可能的协同/互相提供底物与促进步骤(如与 Fusobacterium 等共同出现的概念)。
综上,Solobacterium moorei 是一种常见于舌苔深层的专性厌氧菌,能够产生硫化氢、甲硫醇等挥发性硫化物,因此与口源性口臭密切相关。它还常与其他厌氧菌共同存在于舌苔、牙菌斑和牙周袋中,形成致臭生物膜,并可能参与牙周炎、根管感染及牙槽脓肿等口腔疾病。
改善口臭,关键不只是“遮住气味”,而是找到并控制感染和菌群失衡的来源。日常应坚持刷牙、清洁舌背、使用牙线或冲牙器,定期进行口腔检查,及时处理牙周炎、龋病和根管感染。漱口水只能作为辅助,不能替代规范治疗;抗生素也不建议自行使用。
对于持续、反复或原因不明的口臭,建议进行口腔菌群检测,了解致臭菌及整体微生态状况,并结合口腔检查制定更有针对性的干预方案。治疗后复查,还可以帮助评估症状和菌群是否改善,为后续口腔护理与精准管理提供参考。
需要注意的是,菌群检测结果不能单独用于诊断,但可以作为辅助依据,帮助医生结合口气检测、牙周状况、舌苔情况及临床症状,进一步判断口臭可能来源,并优化后续干预方案。
主要参考文献
Barrak I, Stájer A, Gajdács M, Urbán E. Small, but smelly: the importance of Solobacterium moorei in halitosis and other human infections. Heliyon. 2020 Oct 29;6(10):e05371.
Chen Y, Qin Y, Fan T, Qiu C, Zhang Y, Dai M, Zhou Y, Sun Q, Guo Y, Hao Y, Jiang Y. Solobacterium moorei promotes tumor progression via the Integrin α2/β1-PI3K-AKT-mTOR-C-myc signaling pathway in colorectal cancer. Int J Biol Sci. 2025 Jan 27;21(4):1497-1512.
Yu S, Wang X, Li Z, Jin D, Yu M, Li J, Li Y, Liu X, Zhang Q, Liu Y, Liu R, Wang X, Fang B, Zhang C, Wang R, Ren F. Solobacterium moorei promotes the progression of adenomatous polyps by causing inflammation and disrupting the intestinal barrier. J Transl Med. 2024 Feb 17;22(1):169.
Liu WJ, Xiao M, Yi J, Li Y, Kudinha T, Xu YC. First case report of bacteremia caused by Solobacterium moorei in China, and literature review. BMC Infect Dis. 2019 Aug 20;19(1):730.
Stephen AS, Naughton DP, Pizzey RL, Bradshaw DJ, Burnett GR. In vitro growth characteristics and volatile sulfur compound production of Solobacterium moorei. Anaerobe. 2014 Apr;26:53-7.
Alauzet C, Aujoulat F, Lozniewski A, Ben Brahim S, Domenjod C, Enault C, Lavigne JP, Marchandin H. A New Look at the Genus Solobacterium: A Retrospective Analysis of Twenty-Seven Cases of Infection Involving S. moorei and a Review of Sequence Databases and the Literature. Microorganisms. 2021 Jun 5;9(6):1229.
Bachtiar BM, Soeroso Y, Sunarto H, Maitimu FC, Bachtiar EW. Relationships between Solobacterium moorei and Prevotella intermedia in subgingival microbiota of periodontitis patients with halitosis: A preliminary study using qPCR. Saudi Dent J. 2022 Mar;34(3):211-219.
Oshibuchi K, Yang J, Obana N, Fukuda S, Arakawa K. Complete genome sequence of Solobacterium moorei JCM 10645T isolated from a human stool sample. Microbiol Resour Announc. 2024 Jan 17;13(1):e0096523.
Zheng G, Summanen PH, Talan D, Bennion R, Rowlinson MC, Finegold SM. Phenotypic and molecular characterization of Solobacterium moorei isolates from patients with wound infection. J Clin Microbiol. 2010 Mar;48(3):873-6.
Popovic K, Arepalli SSVL, Saju S, Drevets D. Solobacterium moorei sepsis secondary to flexor tenosynovitis: a case report and review of literature. ASM Case Rep. 2025 Jul 8;1(5):e00054-25.
Chen Y, Zhang J, Ding Y, Zhu F, Chen Y. Colorectal cancer pathogenesis, oncogenic signaling networks and targeted therapeutic advances. Mol Biomed. 2026 Mar 14;7(1):32.
Sárvári KP, Sántha D, Kovács R, Körmöndi S, Pető Z, Vereb T, Sztanó B. Six cases of Solobacterium moorei isolated alone or in mixed culture in Hungary and comparison with previously published cases. Anaerobe. 2020 Oct;65:102241.
Pedersen RM, Holt HM, Justesen US. Solobacterium moorei bacteremia: identification, antimicrobial susceptibility, and clinical characteristics. J Clin Microbiol. 2011 Jul;49(7):2766-8.
谷禾健康
Veillonella denticariosi(龋齿韦荣氏球菌)是一种严格厌氧的革兰阴性口腔球菌,最初从人类龋坏牙本质分离。其在人群中相对少见:在健康成人口腔多仅于少数龈上牙菌斑样本检出,但在儿童龋损、龋坏牙本质及部分儿童牙面生物膜中可见。
其关键生理特征在于以乳酸等短链有机酸为能源,并将其转化为丙酸盐、乙酸盐、CO₂和H₂。菌群互作方面,它可能通过乳酸交叉喂养与链球菌、乳酸杆菌、放线菌等产酸菌共生,并作为口腔 Veillonella 属成员参与早期牙菌斑构建、代谢网络维持及多物种生物膜成熟。属层面证据亦提示 Veillonella 可能充当桥接菌或辅助病原体,促进更厌氧、更致病菌群的定植。
在疾病关联中,现有证据中最明确的是龋齿。更可能的解释是:V. denticariosi 属于适应龋损生态位的乳酸利用者,并可作为口腔菌群失衡的标志之一,而非单独的主致龋病原体。其种水平耐药谱数据仍不足,但口腔Veillonella属整体存在四环素耐药、β-内酰胺酶相关基因及生物膜耐受风险,因而值得在临床与微生态研究中持续关注。
本文将围绕“V.denticariosi是什么、在哪儿更常见、能做什么等”展开梳理,帮助更科学地理解其在人体健康,尤其是儿童龋齿发生发展中的可能作用,并明确还需要哪些证据以推动相关性走向更可靠的机制层面。
Veillonella denticariosi是一种源自人类口腔的革兰氏阴性厌氧球菌,最初分离自龋坏牙本质。它属于口腔 Veillonella 群体中的一个相对低丰度、部位偏向明显的物种。
1
分类和基因组特征
▸ 分类学
Veillonella denticariosi属于广义厚壁菌门(Firmicutes sensu lato)、Veillonellaceae科下Veillonella属。
注:虽然它归入 Bacillota/Firmicutes 大类,但具有革兰阴性样双层细胞包膜结构,因此染色表现为革兰氏阴性。
▸ 模式株与基因组信息
主要模式株:
•V. denticariosi JCM 15641ᵀ
•DSM 19009
•CCUG 54362
•CIP 109448
•KCTC 15017
•RBV106
V. denticariosi JCM 15641ᵀ 的基因组大小约为1.98 Mb,G+C 含量为42.9%,高于多数其他口腔Veillonella,如V.parvula、V.dispar、V.rogosae 多在 38–39% 左右。
Veillonella物种模式株16S rRNA序列的系统发育树
编辑
doi: 10.1099/ijs.0.65096-0.
2
细胞形态与结构
V. denticariosi的已知形态符合Veillonella 属典型特征:
•小型球菌(球形/肾形,直径 0.3–0.5 μm);
•革兰氏阴性;
•严格厌氧;
•不形成芽孢;
•无鞭毛,无运动性;
•一般不具备明显荚膜;
•可单个、成对、短链或团块状聚集。
细胞超薄切片的电子显微照片
编辑
doi: 10.1099/ijs.0.65096-0.
3
生长环境
▸ 最初分离来源
V. denticariosi最初来自:
这说明它具有适应龋坏牙本质微环境的能力。
▸ 适宜的生长环境
已知或推断适宜环境包括:
健康口腔常见条件为:温度约 33.2–38.2°C、pH 接近中性、唾液流动和菌群平衡稳定。
但在牙菌斑和龋损中,环境会变为:
这些条件有利于Veillonella利用乳酸生长。
4
人群和口腔中的分布
Veillonella属是人类口腔中常见且较丰富的菌群成员,但V.denticariosi并不是最常见的优势种。
口腔Veillonella菌种类数量,基于口腔卫生状况
编辑
doi: 10.3390/ijerph192113998.
▸ 龋损部位中更易存在V. denticariosi
儿童龋损与无龋部位研究显示,V. parvula、V. dispar 和 V. atypica 可同时见于龋损和健康部位,而 V. denticariosi 仅在龋损部位中检出,V.rogosae 仅见于无龋样本。龋损部位的 Veillonella多样性低于健康牙面,且更常由单一 Veillonella 种占优势。
编辑
尽管 V. denticariosi 检出数量不高,但其仅出现在有龋儿童的龋损中,提示其具有一定的疾病部位特异性。
▸V. denticariosi在正常儿童中也可能存在
在印尼一项针对 60 名 6–7 岁儿童的研究中,营养正常儿童 31 名、发育迟缓儿童 29 名;结果显示,营养正常儿童的V. denticariosi水平高于发育迟缓儿童。
因此,在某些儿童龈上牙面生物膜中,V.denticariosi可作为正常的可检测菌群成员;但在龋损研究中,它又表现出龋损相关性。因此它的生态意义可能高度依赖部位、年龄、人群和疾病。
Veillonella在口腔生物膜中的生态和代谢作用
编辑
doi: 10.3389/froh.2026.1740043.
5
代谢能力
▸ 核心代谢特征:乳酸利用
Veillonella属最典型的生理特征是:不能或很弱地利用多数糖和氨基酸作为主要能源,而主要发酵短链有机酸,尤其是乳酸。
一般认为,Veillonella 缺乏完整的糖发酵能力,不能像Streptococcus mutans那样直接利用蔗糖或葡萄糖大量产酸,主要依赖其他细菌产生的乳酸等有机酸。其主要底物包括乳酸、丙酮酸、苹果酸、富马酸、草酰乙酸,部分情况下可利用琥珀酸;泛基因组分析还提示其可能具有果糖和半乳糖相关代谢潜力。
主要代谢产物为乙酸盐、丙酸盐、CO₂和H₂。
▸ 果糖代谢能力
早期认为 Veillonella 主要不能利用糖,但 2021 年比较泛基因组研究发现,包括V. denticariosi在内的八种口腔 Veillonella 均保守携带果糖代谢通路,提示其在一定条件下除乳酸外也可能利用果糖供能。
该通路大致为果糖进入 EMP 途径中间产物,并进一步转化为乙酸盐和丙酸盐。不过,这一结论主要基于基因组预测,仍需体外代谢组和培养实验验证。
▸ 硫胺素/维生素B1相关代谢
部位专一性研究显示,牙菌斑和角化牙龈专一性 Veillonella 更可能保留硫胺素合成相关基因,而舌背专一性菌株则缺失部分合成基因,可能依赖邻近菌提供硫胺素或其前体;同时,所有口腔 Veillonella 均具有硫胺素转运相关能力。
V.denticariosi在健康样本中仅少量见于龈上菌斑,且在泛基因组中与V. parvula类群较近,因此可能更适应牙菌斑生态位,但其硫胺素通路是否完整仍需结合具体基因组注释确认。
▸ 酶活性
V.denticariosi记录的较稳定酶活性包括:
阳性或可阳性:
•过氧化氢酶—阳性;
•酸性磷酸酶—阳性;
•萘酚AS-BI磷酸水解酶—阳性;
•酯酶—部分记录可阳性。
阴性:
•氧化酶—阴性;
•脲酶—阴性;
•吲哚—阴性;
•碱性磷酸酶—阴性;
•多数糖苷酶—阴性;
•多数芳基酰胺酶—阴性;
•胰蛋白酶—阴性;
•α-胰凝乳蛋白酶—阴性;
•谷氨酸脱羧酶—阴性;
•精氨酸双水解酶—阴性。
这些特征总体支持:V.denticariosi的糖降解酶谱较弱,更依赖乳酸、有机酸及有限的碳水化合物旁路代谢。
注:还有研究发现Veillonella 可通过胱硫醚 β-合成酶/裂解酶由L-半胱氨酸产生少量 H₂S;该能力主要为属水平特征,V.denticariosi的具体产率报道较少,且低于F.nucleatum。
6
耐药性(药敏概况)
V. denticariosi 的种水平证据有限,现有文献尚未提供其系统性或临床药敏谱,因此不能直接断定其对某类抗生素必然耐药;但可从口腔Veillonella 属水平推测其潜在耐药风险。
▸ 通常敏感
甲硝唑、克林霉素、β‑内酰胺类(氨苄西林、哌拉西林/他唑巴坦、头孢西丁、亚胺培南)—研究发现多数 Veillonella 临床株对碳青霉烯类敏感。
▸ 四环素耐药
口腔Veillonella 属曾被认为是口腔中四环素耐药基因的储存库之一。因此 V. denticariosi 作为口腔 Veillonella 成员,也需要关注四环素耐药潜力。
▸ 需注意β-内酰胺类耐药性
传统上,Veillonella 常被认为对:青霉素、氨苄青霉素、阿莫西林较敏感。但近年来口腔 Veillonella 对青霉素/阿莫西林耐药的报道增加。
▸ 生物膜增强耐受
即便菌株本身抗生素耐药性不高,生物膜状态下也可能表现出更高抗菌耐受性。口腔Veillonella 可参与多菌种生物膜成熟,因此可能通过以下方式间接增强抗菌耐受:
•参与细胞外基质结构;
•促进多物种空间聚集;
•降低氧化压力;
•与其他菌共享代谢产物;
•提供水平基因转移平台。
7
与人体的相互作用
▸ 正常定植与生态位适应
V. denticariosi是人类口腔相关菌,但并非普遍高丰度常驻优势种。它主要与以下生态位相关:
它与人体的关系更接近低丰度共生菌、条件性生态位适应菌或潜在病原菌:在健康生态中可作为低丰度正常菌群存在,但在酸化、乳酸富集、厌氧增强或菌群失衡时,可能扩增并参与疾病相关生态。
▸ 免疫刺激
作为革兰阴性菌,V. denticariosi 理论上具有:
属层面研究显示,部分Veillonella,尤其V.parvula,其 LPS 可通过 TLR4 相关通路激活巨噬细胞并促进炎症;肠道中过量V. parvula 也可加重炎症。但 V. denticariosi 的免疫活性缺乏直接研究,因此只能谨慎推断其可能具有革兰阴性菌共有的免疫刺激潜力,而其炎症强度、受体通路及临床意义仍不明确。
▸ 与营养的潜在联系
印尼儿童研究首次提示,V. denticariosi数量与儿童营养状态存在统计关联:其在正常营养儿童中高于发育迟缓儿童,在口腔卫生良好儿童中高于中等或较差者。
该研究认为,V.denticariosi、V.infantium、V.rogosae和V.tobetsuensis可能作为儿童发育迟缓的潜在临床生物指标。但该研究为横断面设计,无法证明因果关系,合理解释包括:
8
与其他菌群的相互作用
▸ 与链球菌的乳酸交叉喂养
这是 Veillonella 最核心的生态关系。链球菌,尤其是口腔早期定植菌和产酸菌(如Streptococcus mutans、Streptococcus gordonii、Streptococcus sanguinis、Streptococcus mitis),可代谢糖产生乳酸;Veillonella 则以乳酸为主要能源,将其转化为丙酸盐和乙酸盐,促进共生生长。
二者共同推动早期牙菌斑结构形成和代谢网络建立。在龋病环境中,V. denticariosi 可能利用S.mutans、乳杆菌等产乳酸菌产生的乳酸,在龋损内增殖。
▸ 对链球菌生物膜的促进作用
属层面研究显示,口腔Veillonella可促进链球菌生物膜形成。机制包括:
例如,V. tobetsuensis与Streptococcus gordonii 在早期口腔生物膜形成中存在明确互作。尽管这并非 V. denticariosi 的直接证据,但提示口腔 Veillonella 可能普遍参与链球菌生物膜构建。
▸ 作为桥接菌
研究发现,Veillonella是一种重要的“桥接菌”,可连接早期定植菌(Streptococcus、Actinomyces)、中期定植菌(Fusobacterium nucleatum)及晚期厌氧病原菌(Porphyromonas gingivalis、Tannerella、Treponema 等)。
作用方式包括:
▸ 与Fusobacterium nucleatum的关系
具核梭杆菌(Fusobacterium nucleatum)是典型的中期桥接菌,Veillonella可与其共存并促进厌氧生态建立。V. denticariosi 的过氧化氢酶阳性提示其可能分解 H₂O₂,降低链球菌等产生的氧化压力,从而有利于F. nucleatum等更严格厌氧菌定植。
注:但这一机制仍属推断,需V. denticariosi直接共培养证据支持。
▸ 与其他牙周病原菌的关系
属层面研究显示,Veillonella可通过提供血红素/氯化血红素相关支持、可溶性因子、降低氧化压力及参与生物膜空间结构形成,促进Porphyromonas gingivalis的定植和生长。
因此,Veillonella 可被视为辅助病原体:自身未必强致病,却能帮助更强病原菌定植、扩增并发挥致病性。
注:对 V. denticariosi 而言,这种作用仍缺乏直接实验证据,但作为口腔 Veillonella 成员,其可能具备部分相关生态功能。
关于Veillonella denticariosi(龋齿韦荣氏球菌)在疾病与健康中的作用,现有证据主要集中于三个方面:其在口腔生态系统和健康状态中的功能、与龋病及牙周病等口腔疾病的关联,以及与口腔外健康结局的潜在联系及证据局限。
总体来看,V. denticariosi 并非一个已被充分证实的单一致病菌,更适合作为口腔生物膜生态变化的物种级标志物来理解。其生物学意义并非固定不变,而是取决于其所在的口腔部位、共存菌群结构以及疾病发生发展的不同阶段。
V.denticariosi 在健康中的作用
◮ 维持生物膜代谢平衡
属层面看,Veillonella在健康口腔中的潜在有益作用包括:
但对V. denticariosi来说,它在健康人群中通常不是高丰度优势种。
◮ 牙菌斑低丰度成员
在口腔部位专一性研究中,V.denticariosi的检出十分有限,仅在两个龈上菌斑样本中被检测到。这一结果提示,在健康成人的口腔微生物群中,V.denticariosi并不是常见或广泛存在的成员,其丰度和出现频率可能都相对较低。
然而,来自印尼儿童的研究显示,V. denticariosi 在儿童第一恒磨牙牙面生物膜中可以达到较高丰度,并且在正常营养状态和良好口腔卫生的儿童组中更为丰富。由此可见,V. denticariosi的生态意义可能具有年龄和部位相关性:它在健康成人口腔中并不常见,但在特定儿童牙面生物膜生态中,可能是正常菌群的一部分。
V.denticariosi在疾病中的作用及丰度变化
编辑
◮ 龋齿(儿童早期龋齿)—最相关
这是V. denticariosi最明确的相关疾病。
证据:
可能作用机制:
编辑
因此,更恰当的结论是:V. denticariosi与龋坏牙本质及其龋损生态位相关,但目前证据不足以认定其为单独的主要致龋病原菌。它更可能是乳酸驱动型龋损生态中的适应者、代谢互作伙伴以及失衡状态的指示物。
◮ 牙周炎—属层面证据较丰富
属层面证据显示:
V. denticariosi可在健康及牙周炎患者龈下菌斑中低丰度检出,但相比 V. parvula其与慢性牙周炎的特异性关联证据较弱。作为紫色复合体(purple complex)成员,它可与具核梭杆菌(F.nucleatum)共聚集,参与桥接早期与晚期定植菌,但在牙周炎活跃期其相对丰度通常下降(被红色/橙色复合体取代),故仍倾向于代表相对健康的牙周微生态成分。
不过,V. denticariosi在牙周炎中的直接证据仍然较少;它可能具备参与牙周生物膜生态的潜力,但目前尚不足以将其明确视为牙周炎相关的优势种。
◮ 种植体周围炎—丰度更高
部分研究发现,Veillonella属在种植体周围炎中可能增多,并与以下因素相关:钛颗粒、氧化应激、生物膜成熟以及厌氧微环境。其过氧化氢酶活性或可帮助其适应氧化应激。
◮ 与口臭、牙髓、根管和牙源性感染的联系
编辑
Veillonella 属可见于:
V. denticariosi 来源于龋坏牙本质,理论上可能参与深龋向牙髓感染发展的厌氧生态,但目前缺乏种水平直接证据。
此外,部分Veillonella可利用L-半胱氨酸产生硫化氢(H₂S),从而可能与口臭有关;该过程还会受pH 和乳酸水平调节。
◮ 与口腔鳞状细胞癌的潜在关系
研究发现,Veillonella 在口腔鳞状细胞癌(OSCC)发展中可能呈阶段性变化:在口腔潜在恶性病变或早期肿瘤发生阶段可能升高,而在晚期 OSCC 中常下降。其作用更像是肿瘤相关微生物群的生态调节因子,而非单一致癌菌。
OSCC发育阶段Veillonella丰度动态
编辑
doi: 10.3389/froh.2026.1740043.
可能机制包括:
Veillonella属对口腔致癌的假设机制
编辑
doi: 10.3389/froh.2026.1740043.
对于V. denticariosi而言,更稳妥的说法是:它可能参与肿瘤前或肿瘤相关的菌群失衡变化,但目前缺乏证据表明它是 OSCC 的独立致癌因子。
V.denticariosi与口腔外疾病
◮ 发育迟缓儿童V.denticariosi丰度变化
编辑
印尼儿童研究发现V. denticariosi与儿童营养状态相关:
但需强调:这并非因果证明。口腔卫生、饮食与糖摄入、家庭经济及卫生条件等因素都可能造成混杂;仍需纵向研究加以验证。因此,更合理的结论是:V. denticariosi 可能反映儿童口腔生态与营养相关状态,但其是否参与发育迟缓的病理过程尚不明确。
◮ 可能与心血管疾病、系统性炎症相关
Veillonella属还被报道与动脉粥样硬化斑块、系统性炎症等口腔外健康问题存在关联。部分研究发现 Veillonella 和 Streptococcus 可在动脉粥样硬化斑块中被检测到,提示口腔菌群可能与心血管疾病相关。
然而,对V. denticariosi来说,这类证据更弱。目前尚不能说明它直接参与口腔外疾病。更合理的理解是:如果口腔菌群失衡、牙周炎或菌血症风险增加,口腔 Veillonella 成员可能作为整体微生物网络的一部分参与系统性炎症关联,但V. denticariosi 的独立作用仍需验证。
V. denticariosi在疾病中的意义主要体现在龋病相关生态位中。它可能通过乳酸利用、生物膜共聚集、厌氧环境适应和与其他致病菌的代谢互作,参与龋病生物膜的形成和维持。
对于牙周病、牙髓根尖周病、口臭和口腔癌,其作用目前更多来自 Veillonella 属层面的推断。总体来看,V.denticariosi更可能是口腔微生态失衡的参与者和标志物,而不是单独、强致病的病原菌。
综上所述,Veillonella denticariosi(龋齿韦荣氏球菌)是一种生态位特征鲜明、但研究仍相对有限的口腔厌氧球菌。它以乳酸等短链有机酸为核心能源,通过交叉喂养与链球菌、乳杆菌等产酸菌建立共生关系,并作为潜在的桥接菌参与多物种生物膜的构建与厌氧微环境的维持。在人群分布上,它在健康成人口腔中并不常见,却与龋坏牙本质、儿童龋损及特定儿童牙面生物膜密切相关,呈现出高度依赖部位、年龄与生态条件的分布特征。
在疾病层面,V. denticariosi与龋齿的关联最为明确,但现有证据更支持其作为龋损生态位的适应者、乳酸利用者与菌群失衡的标志物,而非独立的主导致龋病原体。至于牙周炎、牙髓根尖周病、口臭、口腔鳞状细胞癌乃至儿童发育迟缓、心血管疾病等口腔外关联,目前多来自 Veillonella 属层面的推断,种水平的直接证据仍显不足。
因此,理解V. denticariosi的关键不在于简单地将其归为”致病菌”或”有益菌”,而在于将其置于动态的口腔微生态网络中加以审视——它的意义随部位、菌群结构与疾病阶段而变化。未来仍需种水平的培养实验、代谢组学、共培养模型与纵向临床研究,才能进一步厘清其在健康维持、龋病发生及菌群失衡中的具体角色,并评估其作为口腔微生态标志物或潜在干预靶点的价值。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Byun R, Carlier JP, Jacques NA, Marchandin H, Hunter N. Veillonella denticariosi sp. nov., isolated from human carious dentine. Int J Syst Evol Microbiol. 2007 Dec;57(Pt 12):2844-2848.
Zhou P, Manoil D, Belibasakis GN, Kotsakis GA. Veillonellae: Beyond Bridging Species in Oral Biofilm Ecology. Front Oral Health. 2021 Oct 29;2:774115.
Dame-Teixeira N, de Lima AKA, Do T, Stefani CM. Meta-Analysis Using NGS Data: The Veillonella Species in Dental Caries. Front Oral Health. 2021 Oct 22;2:770917.
Theodorea CF, Azzahra NA, Idrus E, Nurkolis F, Djais AA, Mashima I. The role of Veillonella species in oral carcinogenesis: is prevalence linked to oral squamous cell carcinoma? Front Oral Health. 2026 May 8;7:1740043.
Giacomini JJ, Torres-Morales J, Dewhirst FE, Borisy GG, Mark Welch JL. Site Specialization of Human Oral Veillonella Species. Microbiol Spectr. 2023 Feb 14;11(1):e0404222.
Mashima I, Liao YC, Sabharwal A, Haase EM, Nakazawa F, Scannapieco FA. Draft Genome Sequences of Four Strains of Recently Established Novel Veillonella Species Isolated from Human Oral Cavities. Genome Announc. 2018 Apr 12;6(15):e00259-18.
Mashima I, Liao YC, Lin CH, Nakazawa F, Haase EM, Kiyoura Y, Scannapieco FA. Comparative Pan-Genome Analysis of Oral Veillonella Species. Microorganisms. 2021 Aug 20;9(8):1775.
Arif N, Sheehy EC, Do T, Beighton D. Diversity of Veillonella spp. from sound and carious sites in children. J Dent Res. 2008 Mar;87(3):278-82.
Mashima I, Theodorea CF, Thaweboon B, Thaweboon S, Nakazawa F. Identification of Veillonella Species in the Tongue Biofilm by Using a Novel One-Step Polymerase Chain Reaction Method. PLoS One. 2016 Jun 21;11(6):e0157516.
Theodorea CF, Diven S, Hendrawan D, Djais AA, Bachtiar BM, Widyarman AS, Seneviratne CJ. Characterization of Oral Veillonella Species in Dental Biofilms in Healthy and Stunted Groups of Children Aged 6-7 Years in East Nusa Tenggara. Int J Environ Res Public Health. 2022 Oct 27;19(21):13998.
Mashima I, Nakazawa F. The influence of oral Veillonella species on biofilms formed by Streptococcus species. Anaerobe. 2014 Aug;28:54-61.
谷禾健康
Dialister invisus 是一种革兰氏阴性厌氧球杆菌,最早于2003年从人类口腔感染样本中发现,主要来源于牙髓、根管和牙周感染,也可存在于肠道、阴道和呼吸道。它不如典型致病菌广为人知,因此常常被忽视,但近年来研究发现,它可能参与多种疾病的发生发展。
Dialister invisus 很少或不利用糖类,主要通过代谢氨基酸和肽获取能量,仅产生微量乙酸和丙酸,部分研究还提示其可能产生乳酸。它不仅存在于口腔环境,也可能与肠道微生态相关,提示口腔菌群与肠道菌群并非完全独立,而可能通过“口腔—肠道轴”相互联系。
越来越多研究发现,Dialister invisus 与口腔感染、牙周菌群失衡,以及炎症性肠病、肥胖、骨关节炎、结直肠癌、宫颈癌、轻度认知障碍等多种疾病存在关联。它可能并非单纯的共生菌,而是在特定微生态环境下参与炎症反应、菌群失衡或疾病进展。
本文将围绕 Dialister invisus 的基本特点、分布部位及其与健康和疾病的关系展开介绍。
Dialister invisus是戴阿利斯特杆菌属(Dialister)中的一个重要物种,最早于2003年从人类口腔感染样本中发现,主要来源于牙髓、根管和牙周感染。
1
细胞形态
•形状与大小:小型球杆菌或卵圆形球菌,大小约0.2–0.4×0.3–0.7µm。常单个、成对、短链或小团块排列。
编辑
doi: 10.1099/ijs.0.02640-0.
•运动性与芽胞:未见明确鞭毛结构,非运动性,不产芽胞。
•染色特性:它的一个显著特点是:虽然属于 Firmicutes 门(厚壁菌门),但细胞壁结构为革兰氏阴性型。
•菌落形态:在严格厌氧条件下培养时,菌落特点为:极小、圆形、透明或半透明、低凸起、直径约0.5–0.7mm,有资料称常 <0.5 mm、肉眼不易观察。
这也是其命名中 “invisus” = 看不见/难以看见 的来源之一。
2
生长环境
•氧气需求:专性厌氧(严格厌氧),它偏好低氧或无氧环境,例如:深牙周袋、龈下菌斑、感染根管、坏死牙髓、肠道远端、可能的泌尿生殖道低氧环境。
•温度范围:其最适生长温度为30°C–37°C,低于25°C或高于45°C通常不生长,这与其人体定植特征相符。
3
人群中的分布
• 健康成人
在健康成人中 D.invisus 具有较特殊的“口腔-肠道双生态位”特征:
–口腔检出率较高,可>50%;
-肠道检出率中等或较低,不同队列差异大,一项中国队列中:
口腔样本检出约53.2%;
粪便样本检出约4%;
口腔和粪便共同检出约2.6%。
这提示:D.invisus在口腔较常见,而在粪便/肠道中检出率受人群、方法影响较大。
• 口腔分布
D. invisus 是人类口腔微生物组成员之一,尤其常见于:
-龈下菌斑;
-深牙周袋;
-感染根管;
-坏死牙髓
-根尖周病灶;
-第三磨牙区域牙菌斑;
-种植体周围炎相关生物膜;
在口腔中,它更多与疾病相关生态位联系紧密,而不是典型健康优势菌。
• 根管感染中的检出率较高
多篇文献显示D.invisus在感染根管中检出率较高,尤其是:
-慢性根尖周炎
-原发性根管感染
-坏死牙髓
-急性根尖脓肿
-继发性/顽固性根管感染
部分文献报道其在根管感染中的检出率可达:
约68%–81%,因此它被认为是候选牙髓/根管病原菌。
• 肠道分布
D.invisus可在肠道中检测到,可能存在三种状态:
-真实低丰度定植者;
-口腔来源、经吞咽进入肠道的过客菌;
-炎症或菌群失衡状态下扩增的机会菌。
目前研究和资料倾向认为它在健康肠道中可能是低丰度共生或过客状态;在炎症性疾病中,其意义更复杂。
• 其他人体部位
Dialister属细菌还曾在以下部位或疾病样本中检出:
-阴道微生物组;
-细菌性阴道病样本;
-输卵管炎样本;
-尿路感染样本;
-脑脓肿;
-伤口或脓性感染。
需注意,部分资料仅鉴定到 Dialister 属水平,未必均确认为D.invisus。
4
代谢能力
• 非糖发酵型:不利用或很少利用糖类,也就是说,它不是依靠葡萄糖、蔗糖等碳水化合物发酵作为主要能量来源。
• 主要营养来源:主要依靠氨基酸和肽的代谢获取能量,这使其在蛋白水解产物丰富的环境(如坏死牙髓、炎性肠道)中具有生存优势。
• 代谢产物:仅产生微量乙酸(acetate)和少量丙酸(propionate)。有研究还提到可能产生乳酸(lactate)。
• 酶活性
D. invisus常见的酶活性:
编辑
5
基因组信息
目前对 D. invisus 的基因组结构了解有限,仅 E7.25 菌株提供了部分基因组信息。
6
耐药性
D.invisus的抗菌药物敏感性资料较少,且多停留在 Dialister属水平。
• 万古霉素
大部分Dialister菌株都对万古霉素耐药。
这与其革兰阴性样细胞壁结构相符。万古霉素主要作用于革兰阳性菌细胞壁合成,对革兰阴性菌通常效果差。
• 卡那霉素与粘菌素
有研究发现D.invisus对 粘菌素 colistin 10 μg 敏感,并且Dialister菌株对卡那霉素敏感。
• 抗厌氧菌药物
从厌氧菌治疗经验推测,它可能对部分抗厌氧药物(如甲硝唑、阿莫西林/克拉维酸、克林霉素、碳青霉烯类等)敏感,但不能直接作为临床用药依据。尤其在根管和牙周感染中,治疗核心仍是:
-机械清创;
-根管预备和冲洗;
-牙周刮治和根面平整;
-控制生物膜;
-必要时结合抗菌药物。
7
与人体和其他菌群的相互作用
• 与宿主的关系:情境依赖
D.invisus不是简单的“好菌”或“坏菌”。它更像是:情境依赖型共生/机会致病菌。
在不同部位和不同生态状态下作用不同:
-健康口腔或肠道中:可能低丰度共存;
-深牙周袋或坏死根管中:可能参与炎症性混合感染;
-健康饮食背景下:可能与抗炎免疫标志物有关;
-肠道炎症背景下:可能作为口腔来源迁移菌或菌群失衡标志物。
• 与口腔菌群的互作
D.invisus常作为复杂口腔厌氧菌群的一部分出现,可能与以下细菌共同存在:
Fusobacterium nucleatum
Treponema socranskii
Treponema denticola
Tannerella forsythia
Porphyromonas gingivalis
Prevotella spp.
Selenomonas sputigena
Anaeroglobus geminatus
Dialister pneumosintes
与”红复合体”协同:常与Porphyromonas gingivalis、Tannerella forsythia、Treponema denticola等强致病菌共存,通过提供代谢底物或改变局部微环境来增强整体菌群的致病性。
早期定植者:在龋齿进展和牙髓炎初期即可出现,为后续厌氧菌(晚定植者)创造低氧、营养丰富的环境。
在牙周炎和根管感染中,它往往不是单独致病,而是参与:
-厌氧生物膜稳定
-蛋白水解生态位维持
-炎症微环境适应
-与其他厌氧菌协同造成组织破坏
• 与 Fusobacterium nucleatum 的潜在关系
F. nucleatum 是口腔生物膜中的“桥梁菌”,可连接早期和晚期定植者。D. invisus 常与 F. nucleatum同时在牙周炎或根管感染中检出,提示:
-二者可能共享低氧、蛋白丰富生态位;
-F.nucleatum 可能促进多菌种生物膜成熟;
-D.invisus 可能作为后期厌氧群落成员参与炎症维持。
注:但目前缺少直接机制实验证明二者存在特异性互利关系。
• 与宿主免疫的互作
作为革兰阴性厌氧菌,D.invisus可能通过细胞壁成分及代谢产物影响宿主免疫:
-激活先天免疫;
-促进局部炎症反应;
-与牙周袋中出血、蛋白酶活性、组织破坏相关微生态状态共现;
-通过短链脂肪酸如乙酸、丙酸影响免疫调节。
还有一项饮食-免疫介导研究分析发现:D. invisus 被认为可介导健康饮食模式与 CRP、IL-6、VEGF、脂联素、α1-抗胰蛋白酶等系统炎症/免疫指标之间的关系。
这提示它在某些健康背景下可能与抗炎或代谢稳态有关。
• 口腔-肠道轴
D. invisus 的特殊之处在于:它可能是少数能够同时出现在口腔和远端肠道的细菌之一。
可能路径包括:
-口腔中定植,随唾液吞咽进入胃肠道;
-健康肠道中多数被清除或低活性存在,当肠道屏障受损、炎症、抗生素使用、PPI使用或菌群失衡时,可能更容易检出或扩增。
Dialister invisus 是一种最初分离自感染根管和深牙周袋的厌氧菌,现有证据主要涉及三方面:口腔致病关联、健康状态下的低丰度存在,以及口腔外疾病相关性的尚不确定。
1
D.invisus与口腔疾病
口腔疾病是D.invisus证据最集中的领域。该菌于 2003 年作为新种提出,来源主要是感染根管和深牙周袋。
• 根管感染中检出率较高
编辑
影响因子:5.897
该研究发现Dialister invisus与根管感染密切相关,D. invisus 在未治疗牙的原发性根管感染中检出率为17/21,即81%。
持续性根管感染中也可检出:在根管治疗失败后的持续性根管感染中,D.invisus 检出率为 3/22,即 14%,明显低于原发性感染,但提示其可能参与难治性或持续性根管感染。
但另一项研究纳入60名根管感染患者,包括30例原发性和30例持续性根管感染,并采用改良单步 PCR 检测 D. invisus。
在原发性根管感染中,D. invisus 阳性率为 7/30(23.3%)。
在持续性根管感染中,D. invisus 阳性率为 24/30(80%)。
• 在牙周炎中检出率更高,可能与牙周炎相关
编辑
影响因子:2.926
该研究纳入 50 项临床研究,涵盖 2739 名牙周炎患者和 1747 名牙周健康者。荟萃分析显示,牙周炎患者检出 D. invisus 的可能性显著更高,约为健康者的 3.37 倍。D. invisus 因此被列为与牙周炎显著相关的 25 种细菌之一,提示其可能参与牙周炎相关菌群失调。
需要注意的是,该文分析的是不同研究中微生物检出率/患病率的差异,而非相对丰度的直接定量。因此,更准确地说,D. invisus在牙周炎中的检出率升高,并与牙周炎显著相关,但其是否具有致病作用仍需机制研究证实。
2
D.invisus在健康中的存在
编辑
影响因子:3.998
D. invisus 并非仅见于疾病的专性病原菌;健康成人口腔样本也可检出该菌,提示其可在健康口腔中低丰度潜伏,并在环境改变时竞争力增强。这与健康人体中 Dialister 丰度较低、而种植体周围炎症病灶中 D. invisus 升高的结果一致。
• 健康口腔可检出低丰度,并非疾病特异存在。
• 健康种植体中Dialister 整体比例较低。
3
D.invisus与口腔外疾病
口腔外相关证据相对更为分散,且现有研究大多停留在相关性分析层面。
① 炎症性肠病患者中D.invisus丰度更高
编辑
影响因子:11.607
研究发现,人类肠道中主要的琥珀酸消耗菌群为 Phascolarctobacterium 和 Dialister,但两者在粪便微生物组中高度互斥。
在体外实验中,研究检测了D. invisus,确认其可利用琥珀酸并将其转化为丙酸。但与 Phascolarctobacterium 相比,Dialister 的琥珀酸消耗速率较慢。
既往研究显示,炎症性肠病(IBD)患者中 Phascolarctobacterium 减少、Dialister 增加,并更倾向于呈现 Dialister 主导的琥珀酸代谢型。这可能导致肠道琥珀酸清除减慢、粪便琥珀酸水平升高,并与肠道炎症相关。
② 牙周健康但肥胖个体中D.invisus呈升高趋势
编辑
影响因子:5.241
这项研究发现,在牙周健康个体中,肥胖与龈下菌群中 Dialister invisus丰度升高有关。研究比较了瘦型与超重/肥胖受试者的龈下菌斑微生物组成,发现 D. invisus 与多种牙周病相关菌一起,在肥胖组中相对丰度更高,并可作为区分肥胖与瘦型个体的差异菌种之一。
此外,D. invisus与肥胖相关的血液代谢紊乱存在关联:其丰度与脂质相关代谢模式呈负相关。总体而言:即使在无牙周炎、牙周临床健康的人群中,肥胖也可能促进 D. invisus 等牙周病相关厌氧菌在龈下菌群中的富集,从而潜在增加肥胖者未来发生牙周病的风险。
③ 脊柱关节炎中D.invisus丰度升高
Dialister invisus 在脊柱关节炎(SpA),尤其是轴性脊柱关节炎(axSpA)患者中呈升高趋势。
编辑
该系统综述纳入 28 项研究,涵盖 1139 名 SpA 患者和 836 名对照。结果显示,在 axSpA/强直性脊柱炎相关研究中,D. invisus 在 3 项研究中一致升高,涉及 130 名病例和 141 名对照,并被列为 axSpA 中潜在有害的肠道菌。
属水平上,Dialister 也是 axSpA 中较一致升高的菌属之一,可能与疾病加重有关;既往研究还提示其与骨破坏、骨丢失、ASDAS 升高及影像学阳性 axSpA 相关。因此,推测Dialister可能参与 axSpA 的进展。
④ 结直肠癌患者中丰度升高
编辑
影响因子:3.274
有研究合并分析了 109 个 16S rRNA 肠道微生物组数据集,涵盖 46 名结直肠癌(CRC)患者和 63 名健康对照的粪便样本。
结果显示,物种水平上,D. invisus 在 CRC 病例中显著富集,并与 Prevotella copri、Methanobrevibacter smithii、Bacteroides eggerthii 等共同构成 CRC 相关升高菌群。
随机森林模型进一步表明,D. invisus 是区分 CRC 与健康对照的重要预测菌种之一,并被纳入与临床表型/疾病相关的潜在微生物标志物集合。CRC 相关菌群失衡可能通过影响 NF-κB、TLR、细胞因子等炎症和免疫通路参与肿瘤发生,但相关机制主要基于预测分析。
注:但该研究为基于公开数据的关联性分析,不能证明D.invisus直接促进结直肠癌发生。
⑤ D.invisus与HPV感染患者宫颈癌的风险升高有关
编辑
影响因子:2.74
Dialister invisus 与高危 HPV 感染女性发生高级别宫颈病变或宫颈癌的风险升高有关。
该研究比较了正常、宫颈上皮内瘤变(CIN)和宫颈癌女性的阴道微生物群,发现 CIN 和宫颈癌患者菌群多样性升高、Lactobacillus crispatus 明显减少且厌氧菌增多。
D. invisus 的检出与 CIN 2/3 或宫颈癌风险显著相关,既往研究也显示,D. invisus 这种革兰阴性球杆菌与细胞学正常女性一年内新发 HPV 型别感染相关。
因此,D. invisus 可能是 HPV 相关宫颈癌变过程中阴道菌群失衡的相关厌氧菌之一。
⑥ D.invisus在轻度认知障碍患者中丰度升高
一项研究比较了 60 名肥胖、以非裔美国女性为主的老年人肠道菌群,包括轻度认知障碍(MCI)患者和认知正常对照。
结果显示,D. invisus 在 MCI 组中显著升高。调整久坐时间、教育水平、相关用药、抗炎药使用和舒张压等因素后,D. invisus 仍为 MCI 组升高的 ASV 之一。
进一步纳入系统性炎症指标 hs-CRP 后,其与 MCI 的关联不再显著,提示这种关联可能部分受炎症通路影响。研究人员认为,D. invisus 更常见于口腔微生物组和牙周病研究,粪便中升高可能反映口腔来源或口腔菌群状态,并间接关联口腔健康、炎症和认知功能下降。
D. invisus可能通过系统性炎症与认知受损相关;但该研究为病例对照研究,不能证明D.invisus直接导致认知下降,其来源和作用机制仍需进一步验证。
D.invisus不是简单的“好菌”或“坏菌”。它更像是:情境依赖型共生/机会致病菌。是藏在口腔和肠道之间的一个“隐形变量”。它虽然不常被大众关注,但可能连接着口腔健康、肠道微生态、免疫炎症和多种慢性疾病。
目前尚无直接证据说明如何专门降低Dialister invisus。更可行的策略是通过规范口腔卫生与饮食、使用广谱漱口剂、益生菌/益生元、草本抗生物膜制剂,以及噬菌体、口腔微生物移植等前沿手段,整体改善口腔微生态失衡,从而间接抑制 Dialister 属等厌氧机会致病菌。临床上,更建议基于口腔微生物检测,在牙周专科医生指导下制定个体化微生态干预方案,而非仅针对单一菌种。
未来如果能进一步明确它在人体内的作用机制,可能为疾病风险评估、微生态干预以及精准健康管理提供新的思路。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Downes J, Munson M, Wade WG. Dialister invisus sp. nov., isolated from the human oral cavity. Int J Syst Evol Microbiol. 2003 Nov;53(Pt 6):1937-40.
Anthamatten L, von Bieberstein PR, Menzi C, Zünd JN, Lacroix C, de Wouters T, Leventhal GE. Stratification of human gut microbiomes by succinotype is associated with inflammatory bowel disease status. Microbiome. 2024 Sep 30;12(1):186.
Khocht A, Paster B, Lenoir L, Irani C, Fraser G. Metabolomic profiles of obesity and subgingival microbiome in periodontally healthy individuals: A cross-sectional study. J Clin Periodontol. 2023 Nov;50(11):1455-1466.
Antezack A, Etchecopar-Etchart D, La Scola B, Monnet-Corti V. New putative periodontopathogens and periodontal health-associated species: A systematic review and meta-analysis. J Periodontal Res. 2023 Oct;58(5):893-906.
Haque S, Bantun F, Jalal NA, Faidah H, Babalghith AO, Alobaidy MA, Aldairi AF, Ahmad F. Gut microbiota alterations and their association with tumorigenic pathways in colorectal cancer: insights from a pooled analysis of 109 microbiome datasets. Gut Pathog. 2025 Oct 21;17(1):82.
Wang L, Wang Y, Zhang P, Song C, Pan F, Li G, Peng L, Yang Y, Wei Z, Huang F. Gut microbiota changes in patients with spondyloarthritis: A systematic review. Semin Arthritis Rheum. 2022 Feb;52:151925.
Siqueira JF Jr, Rôças IN. Uncultivated phylotypes and newly named species associated with primary and persistent endodontic infections. J Clin Microbiol. 2005 Jul;43(7):3314-9.
Naginyte M, Do T, Meade J, Devine DA, Marsh PD. Enrichment of periodontal pathogens from the biofilms of healthy adults. Sci Rep. 2019 Apr 2;9(1):5491.
谷禾健康
你有没有想过,亲吻一个人之后,你们交换的并不只是唾液、体温、情绪和暧昧,还有微生物。
微生物借着一次拥抱、一次深吻、一次共餐,在两个身体之间悄悄迁徙。它们不写情书,不发消息,不留下聊天记录,却可能比你更诚实地记得:你曾经和谁靠近过。
我们通常以为,身体是属于自己的。皮肤像一道边界,把我和世界分开。皮肤里面是我,皮肤外面是别人,是房间,是城市,是社会。
但微生物组研究正在告诉我们:这道边界可能没有想象中那么坚硬。
在我们的肠道、皮肤、口腔和呼吸道里,生活着庞大的微生物群。它们参与消化,调节免疫,影响营养吸收,也可能通过肠-脑轴影响情绪、压力反应和心理健康。更重要的是,这些微生物在某种意义上,“活”在我们的关系里、家庭里、城市里、制度里、时代里。
也就是说,身体并不是一个静止的内部世界,而是一场持续发生的交换。这种关于生命的理解,其实并不陌生。
《道德经》里讲:“万物负阴而抱阳,冲气以为和”,生命从来不是孤立的,而是在对立、流动、交换与平衡之中暂时成形。
现代科学正在从另一个角度靠近这个古老判断:食物、水、空气、家庭、伴侣、宠物、办公室、饮食、压力、城市环境、污染、孤独,甚至社会阶层,都可能参与塑造身体里的微生态。
本文借助微生物组这个窗口,重新理解身体与社会之间隐秘而深刻的连接:我们如何被关系塑造,如何被压力改变,如何被城市驯化,又如何把社会处境慢慢写进身体,在时代的洪流里,集体性的焦虑、速度、孤独与失衡,最终如何落实为一个人身体里的压力反应、免疫波动和微生态改变。
本文目录
01|家庭:血缘之外的继承
出生:身体不是一张白纸
家庭:一个微生物共同体
情绪:身体会记住家的温度
生活方式:餐桌、清洁与身体节律
宠物:家里的另一种微生物入口
02|亲密关系:身体记得谁靠近过
接吻:亲密是一场微生物迁徙
同居:菌株共享比血缘更有力量?
关系变化:结婚、分开与微生态重组
关系质量:安全感不抽象,它有身体回声
03|社交网络:微生物如何在人群中流动
接触:握手、拥抱与共享空间
社交位置不同,微生物暴露也不同
疫情改变的不只是病毒传播
04|孤独与压力
支持性互动 vs 压力性互动
社会支持:不只是安慰,也是一种生理缓冲
慢性压力:如何从关系进入肠道
从乳杆菌到犬尿氨酸:压力的代谢痕迹
肠道菌群反过来影响行为
05|城市:现代生活如何改变微生物暴露
城市是身体的外部生态
室内化生活,离土壤越来越远
绿地:城市里的微生物入口
06|健康选择,也需要现实条件的支持
不同生活条件,会进入菌群结构
健康建议,也要落到现实里
公共条件,也在塑造身体微生态
文化也会塑造身体边界
07|结语:健康不是控制身体,而是重建共生
从微生物组的角度看,一个人出生的那一刻,已经进入了一张看不见的交换网络。
母亲的身体、分娩方式、喂养方式、家庭成员的触摸、房间里的空气、餐桌上的食物,都会参与塑造一个婴儿最早的身体生态。
出生:身体不是一张白纸
我们最早继承的,除了基因、姓氏、长相、血缘,也包括一套看不见的微生物命运。
新生儿与母亲之间存在明显的肠道微生物相似性,这可能与分娩过程和母乳喂养中的微生物传递有关。顺产婴儿更容易获得类似母体阴道菌群的微生物,而剖宫产婴儿则更容易呈现类似皮肤来源的微生物特征;喂养方式同样会影响婴儿早期肠道微生物的建立。
3个月大时,剖宫产婴儿的双歧杆菌和拟杆菌(均为p < 0.05)较低,潜在病原体更多,且成分差异持续至12个月,可能增加疾病风险。
注:这个还是要根据每位妊娠期女性相应的身体状况自行选择,没有一种出生方式能够被简单地道德化,也没有一种喂养方式应该被贴上优劣标签。
这让我们看见一个更深的事实:所谓“我”,从一开始就与另一个身体、一个家庭发生着密切关系。
家庭:一个微生物共同体
共同生活的人,会共享空间、食物、空气、物品、作息、卫生习惯、身体接触。一个家庭有自己的餐桌,有自己的味道,有自己的清洁方式,有自己的睡眠节奏。久而久之,这些东西都会参与塑造家庭成员的身体生态。
我们常说,一个人身上有家里的影子。
过去,这句话多半是在说性格、口音、饮食偏好,或者处理亲密关系的方式。但现在,我们或许可以把它理解得更具体一点:一个人身上,也可能带着家庭的微生物痕迹。
兄弟姐妹之间也会表现出更高的微生物相似性,这可能与共同生活环境、相似的生活方式和遗传因素有关。也就是说,一个家庭内部可能逐渐形成某种独特的家族微生物谱系——不只是血缘上的家族,也是微生物意义上的家族。家庭成员,包括母亲之外的其他人,也可能把某些细菌传递给孩子,参与儿童微生物组的形成。
这也是我们在检测实践中发现,家庭成员之间的肠道微生态相似度比较高。
一个人从小吃惯的饭菜,家里是否经常开窗,父母是否爱干净到近乎焦虑,家中有没有宠物,家庭成员之间是亲密、松弛,还是长期充满争吵、沉默和压抑,这些都不只是记忆的一部分。它们可能通过饮食、压力、免疫、接触、日常行为,慢慢进入身体,成为一个人最早的生态底色。
情绪:身体会记住家的温度
家里的气氛,不只影响一个孩子的性格,也会影响他的身体节律。
长期被回应、被安抚、被稳定照料的孩子,身体更容易建立一种基本的安全感,更少的慢性压力,也更容易形成健康行为。而长期冲突、忽视和不可预测,则会让身体更早进入警觉状态。
这种警觉不止停留在性格里,它会通过应激系统进入身体,HPA 轴、皮质醇、免疫炎症反应,都可能改变肠道微环境,进而影响微生物组。
所以,家的温度不只停留在记忆里。
心理学常说,早年关系会塑造一个人的依恋模式;微生物组研究则让这个判断多了一层身体维度。家庭并不只是塑造一个人如何理解关系,也可能参与塑造他身体内部的生态环境。微生物组,或许正是身体保存早年情绪的隐秘方式之一。
生活方式:餐桌、清洁与身体节律
如果说家庭的情绪影响身体如何应对世界,那么日常生活方式,则更直接地塑造着微生物组。
其中最重要的入口,是餐桌。
餐桌不只是提供热量,也在给肠道微生物提供不同的生态条件。饮食偏好对肠道微生物组的形成尤其有影响。长期摄入营养结构更合理的食物,与更高的微生物α 多样性和代谢通路有关,也会改变某些与人体营养和健康相关的共生功能。
一个家庭长期吃高纤维、多样化、富含天然食材的食物,和长期依赖高糖、高脂、高盐、低纤维的加工食品,肠道里的微生物会面对不同的资源环境。它们的组成、功能和代谢方向,也会随之改变。
但家庭生活方式并不只包括餐桌。
家庭成员往往会共享相似的卫生习惯,并使用相同或类似的卫生产品。这些习惯可能影响皮肤微生物群,进而影响皮肤健康。
洗澡频率、沐浴露、洗发水、肥皂、洗衣液的选择、清洁剂的使用、衣物清洗方式、居住空间的通风与湿度,都可能改变皮肤表面的微生物环境。
运动也是重要变量。
运动可能增加肠道菌群多样性,并改善拟杆菌门/厚壁菌门比例。这一比例常被用于观察肠道菌群结构与体重、肥胖相关病理状态和胃肠健康之间的关系。运动还可能促进某些有益微生物的生长,增强黏膜免疫,并支持产生对胃肠道具有保护作用的代谢产物。
吸烟、饮酒、药物使用等成瘾性行为,也可能影响微生物组。
宠物:家里的另一种微生物入口
养宠物的家庭,往往会与宠物发生更多微生物共享。
尤其是在有婴幼儿的家庭中,宠物暴露可能增加某些与儿童肥胖和过敏性疾病呈负相关的细菌丰度;孕期和生命早期接触宠物,也与婴儿肠道微生物组的某些有益变化有关。
宠物暴露还具有双重效应
它可能增加微生物多样性,给家庭成员带来更丰富的微生物接触。
一只狗每天出门,接触草地、泥土、空气、其他动物和城市角落;它回到家里时,带回来的不只是气味和脚印,也包括一部分外部环境中的微生物。对一个越来越封闭、越来越清洁、越来越室内化的现代家庭来说,宠物有时像一个小型的自然入口。
另一方面,它也可能引入潜在病原体,增加某些健康风险。
有研究报告称,与宠物狗共同生活的女性,其样本中与尿路感染相关的致病性大肠杆菌的水平可能更高。
还有研究表明,母亲孕期接触狗,与男性后代 ADHD 风险之间存在正相关,这一现象仍需要进一步研究解释。
这正是微生物组研究有意思的地方:它很少给出简单的道德结论。
家庭从来不是一个封闭系统。人、动物、食物、空气、地板、沙发、床、户外环境,共同构成了一个流动的微生态网络。在这个网络里,宠物是一种特殊的参与者。它们把外面的世界带进家里,也把家庭成员暴露在一种更复杂的微生物交换之中。
家庭不是命运的全部,却是身体最早的生态现场。在这里,微生物被传递,菌群在共同生活中趋近;饮食、清洁、睡眠、运动、情绪被一遍遍重复,成为身体最初的秩序。一个人带着这些看不见的微生物印记,走向后来更复杂的亲密关系、城市生活与社会世界。
长大之后,我们会进入新的关系,和新的身体靠近,和新的生活空间重叠。从微生物组的角度看,它们也是身体的微生态事件。
接吻:亲密是一场微生物迁徙
亲密关系最直观的微生物入口,是身体接触。
拥抱、握手、亲吻、共餐、共用杯子、共享床铺和浴室,都会让两个身体之间发生微生物交换。深吻这样的亲密行为会带来明显的口腔微生物群趋同,而且接触时间越长,这种趋同可能越明显。
这并不意味着亲吻是危险的,更准确地说,亲密关系让身体的边界变得更开放。两个原本独立的微生态系统,因为接触、共处和重复生活,开始发生某种程度的重叠。
亲密关系不只是心理上的靠近,也是一种生物学意义上的靠近。
同居:菌株共享比血缘更有力量?
如果说接吻是瞬间的微生物迁徙,那么同居就是长期的微生态共处。
研究表明,同居夫妻或情侣,尤其是关系深厚的同居者,其微生物组比单身人士更为多样化。
同居对菌株共享的影响,可能比遗传或年龄更强。也就是说,两个没有血缘关系的人,只要长期生活在同一个空间里,也可能在微生物菌株层面变得更加相似。
编辑
883名同居者中,多数家庭内菌株共享率显著高于非同居者。家庭内共享率达11%–71%。
一个人做饭,另一个人吃;一个人养成夜宵习惯,另一个人也被带进去;一个人爱开窗,另一个人随之暴露在相同的室内外微生物环境中。久而久之,两个人的身体不只是适应彼此的脾气,也适应彼此的微生态。
关系变化:结婚、分开与微生态重组
亲密关系并不是静止的。结婚、同居、搬家、生育、分手、离婚,都会改变一个人的日常环境和微生物暴露。
编辑
婚姻或与伴侣同住可能因为共享生活空间和同步生活方式,增加微生物共享;
而一段关系的结束,则可能减少这种共享。
两个人分开之后,共同建立的一套生态会被拆散。一个人重新独居,重新安排饮食、睡眠和空间,也重新面对压力。
压力与微生物多样性下降有关;
抑郁与肠道微生物丰富度降低之间也存在相关。
关系破裂通常伴随独居、压力和抑郁情绪,因此可能进一步影响微生物组。
失去一个亲密的人,失去的不只是陪伴,也可能是共同餐桌、共同作息、共同空间和共同微生物暴露。身体需要重新适应一个人的生活,重新建立自己的节律。这就是为什么有些关系结束后,人会明显感到身体也变了。
微生物组提供了一个重要视角:关系变化会通过压力、饮食、睡眠和环境接触,进入身体内部。
关系质量:安全感不抽象,它有身体回声
一段支持性的关系,可能降低压力,帮助人维持更稳定的生活方式;一段长期冲突、冷漠、控制或不可预测的关系,则可能让身体长期处于应激状态。
编辑
社会连接可以增强肠道微生物多样性,并稳定其组成;动物研究还发现,社会连接与肠道微生物多样性之间可能存在双向调节关系。
某些特定细菌,例如 粪肠球菌(Enterococcus faecalis),可能通过抑制 HPA 轴过度激活,影响相关脑区神经活动,从而参与社会行为调节。
关系影响压力,压力改变肠道环境,肠道微生物又可能通过免疫、代谢和神经信号影响情绪和行为。
好的关系可能让身体更容易放松,让压力轴不过度紧绷,让饮食和睡眠更稳定,也让微生物组拥有更稳定的内部环境。
关系不是固定不变的。它始终是流动的、需要辨认和调整的。
这是一种对身体和生活秩序的保护。
和谁靠近、同住、共餐、接吻,会改变我们交换微生物的方式;一段关系是支持还是消耗,也会通过压力、睡眠、饮食和免疫反应,改变身体内部环境。
但亲密关系只是社会生活中最贴近身体的一层。再往外看,朋友、同事、邻居、办公室、学校和社区,同样构成了微生物交换的网络。
握手、拥抱、共餐、聊天,使用同一张会议桌,触碰同一个门把手,在同一间办公室里呼吸…
从微生物组角度看,这也是一张看不见的交换网络。人群传播的不只是信息、情绪和观念,也可能传播微生物。
接触:握手、拥抱与共享空间
社交网络影响微生物组,最直接的方式,是身体接触和空间共享。
拥抱、握手,都可以成为微生物传递的通道。除此之外,共用餐具、办公桌、设备、门把手、公共空间,也可能促进不同个体之间的微生物共享。尤其是办公室这样的室内环境,人和空间之间的微生物转移会受到多种因素影响。
一次握手,是礼貌,也是一种微生物接触;
一次拥抱,是安慰,也是一种皮肤微生态的短暂重叠;
…
编辑
在真实生活里,边界一直在被打开:通过皮肤,通过空气,通过物品表面,也通过我们反复进入的空间。
社交位置不同,微生物暴露也不同
社交网络的密度、布局和关系距离,都会影响微生物交换。
更密集的网络,往往意味着更频繁的人际接触,因此可能带来更显著的微生物共享。在某些中心化网络中,处在核心位置的人,也可能因为连接更多人、参与更多互动,而经历更多微生物交换。
在社会传播中,中心人物可能传播消息、观点、情绪和流行趋势。
而在微生物组中,他也可能是一个微生物交通枢纽。
编辑
老师、医生、服务员、销售人员、管理者,或者一个社交极其活跃的人,每天接触的人更多,进入的空间更多,触碰的物品更多。他们不仅处在人际网络的中心,也可能处在微生物交换的高流量位置。
初步研究显示,社交活跃、社会互动更多、社交焦虑较低的人,可能拥有更高的皮肤微生物群多样性。这可能与他们通过人际接触获得更多新的微生物种类有关。
这并不是说社交越多,菌群就一定越好。微生物交换具有双重性:它可能增加多样性,也可能增加潜在病原体暴露。
微生物组研究让我们看到,身体并不只是生活在个人习惯里,也生活在人群结构里。
你站在什么样的社交位置,和多少人接触,进入多少空间,拥有怎样的互动频率,都会改变身体与微生物世界相遇的方式。
疫情改变的不只是病毒传播
社交网络既然会影响微生物传播,那么改变社交网络,也会改变微生物暴露。
公共卫生干预可以通过改变社交网络动力学,影响病原体传播。比如在疫情期间,口罩、远程办公、线上聚会等措施,有效减少了病毒传播。
从更广的微生物组视角看,它也改变了人们的握手、拥抱、共餐、通勤、办公室互动、学校生活和公共空间使用。许多人从高频线下社交,转向屏幕中的低接触生活;从办公室里的共享空间,转向家庭内部的封闭环境。
这种改变有公共卫生意义,也有微生态意义。当这套系统被改变,微生物的流动路径也会随之改变。
当然,疫情期间减少病原体传播是必要的。而长期隔离、过度消毒和极端回避接触,也可能让人失去某些正常的微生物暴露和社会支持。
公共卫生困难的地方在于,在风险控制、社会连接和微生态多样性之间,寻找更合理的平衡。
社交网络让我们看见,微生物组并不只属于个人身体。我们在人群中交换语言,也交换菌群;传播情绪,也传播微生物;建立关系,也建立一张看不见的生态网络。
但社交网络的另一面,是孤独。接下来要看的,是微生物组与现代人最熟悉的一种处境:孤独与压力。
我们的通讯录里有很多名字,群聊里有很多消息,朋友圈里有很多动态,每天都在回复、协作、点赞、开会、闲聊… 似乎从未真正离开人群。
但很多人依然觉得缺少稳定的支持、可依赖的关系、真实的回应、身体放松的安全感。
从微生物组的角度看,孤独、压力、社会支持通过神经内分泌、免疫炎症、饮食行为、睡眠节律和肠-脑轴,改变肠道微生物赖以生存的环境。
支持性互动 vs 压力性互动
在讨论孤独之前,我们先来看两种关系。
有些关系让人放松,让人觉得世界可以被信任;有些关系则让人长期警觉,让身体不断准备防御。前者可能成为压力的缓冲,后者则可能成为压力本身。
这也是为什么,孤独的反面不是热闹,而是支持。不是身边有多少人,而是有没有关系能让身体放松下来。
社会支持:不只是安慰,也是一种生理缓冲
人为什么需要关系?
一个常见答案是:因为人需要陪伴,需要被理解,需要情感支持。
但从身体角度看,社会支持不只是心理安慰,也会影响压力系统、免疫状态、饮食行为和微生物组。
研究指出,强社会网络和支持性关系可以改善心理健康,进而影响个体的生活方式选择。处在支持性社会环境中的人,更可能采取健康行为,包括均衡饮食和良好卫生习惯,而这些行为都可能有利于微生物生态。
情感支持和社会网络支持,也与更好的地中海饮食依从性相关;而这种饮食模式中的充足营养,有助于维持肠上皮屏障、支持黏膜免疫,并为微生物代谢提供营养来源,从而帮助维持肠道微生物组稳态。
换句话说,社会支持可能先影响一个人如何吃饭、如何照顾自己、如何应对压力,再进一步改变肠道微生物所处的生态条件。
编辑
慢性压力:如何从关系进入肠道
社会互动还可以通过影响免疫系统,间接影响微生物组成。
社会关系的质量,例如友谊或冲突,与C 反应蛋白(CRP)等系统性免疫生物标志物水平显著相关。
在压力状态下,大脑还会通过直接的激素和神经信号,进一步调节外周免疫介质的合成,例如 IL-18。这些炎症因子的波动可以改变肠道微环境,从而对人体微生物组产生实质性影响。
也就是说,关系中的冲突和压力,并不是抽象地让人难受。它可能通过免疫系统进入身体,再通过炎症信号改变肠道微生物生活的环境。
研究表明,强社会支持可以减弱与社会痛苦相关脑区的过度激活,包括背侧前扣带皮层(dACC)和布罗德曼 8 区(BA 8)。同时,它也有助于降低个体面对社会压力源时的皮质醇水平。
编辑
当社会压力被大脑识别,身体会启动下丘脑-垂体-肾上腺轴。HPA 轴被反复激活后,皮质醇、免疫反应和炎症状态都可能随之改变。而这些变化,最终会影响肠道环境和肠道微生物群的平衡。
从乳杆菌到犬尿氨酸:压力的代谢痕迹
压力会扰乱肠道微生物平衡,这一过程可能由肠-脑轴介导。慢性压力可以减少有益菌,例如乳杆菌,同时升高循环中的神经活性代谢物,例如犬尿氨酸;这些变化与后续行为改变有关。
恢复乳杆菌丰度,并纠正相关代谢通路的干预,可以逆转这些效应。
编辑
当然,这并不意味着所有压力问题都能被简化成补充乳杆菌就能解决,人的情绪、行为和社会处境远比单一菌群变化复杂。这里提供了一个重要窗口。
心理压力可能会被身体翻译成菌群和代谢变化;而这些变化,又可能进一步参与行为和情绪反应。
肠道菌群反过来影响行为
微生物组也可能反过来影响行为、情绪和社会互动。
研究显示,社会连接可以增强肠道微生物群多样性,并稳定其组成;这种变化还可能进一步反馈调节社会行为。原文特别提到,这种双向调节可能由某些特定细菌物种介导,例如粪肠球菌(Enterococcus faecalis)。
粪肠球菌可能通过抑制 HPA 轴的过度激活,下调相关脑区的神经活动,从而参与社会行为调节。
也就是说,社会行为、压力系统和微生物组之间,可能不是单向关系,而是一个相互调节的回路。
编辑
微生物组研究并不是在鼓励人盲目社交,也不是说越多人际接触越好。它提醒我们的是:人类需要链接,但这种链接最好有质量。
这里需要区分孤独和独处。
一个人可以独处而安定,也可以在人群里感到孤独。
孤独危险的地方在于当这种状态持续太久,孤独就会从心理经验,变成生理环境。它进入压力轴,免疫反应,肠道微生态,也进入一个人对世界的基本感受。
孤独和压力让我们看到,微生物组受到的不只是饮食影响,也受到社会关系的塑造。但关系并不是现代人压力的全部来源。通勤、办公环境、绿地缺失、加工食品、污染、噪音,以及城市生活持续的速度与竞争,同样在重塑我们的身体。当视角从人际关系进一步扩展到城市环境,一个新的问题出现了:城市,正在怎样重塑我们的微生物组?
如果说家庭和亲密关系改变的是人与人之间的微生物交换,那么城市改变的,则是人与环境之间的微生物关系。
城市是身体的外部生态
我们通常把城市理解为生活背景。它是房子、街道、地铁、写字楼、商场、学校、医院和便利店;是通勤路线,是外卖半径,是空气质量,是噪音,是绿化面积,也是一个人每天被迫适应的生活节奏。
编辑
从微生物组角度看,是一套外部生态系统。
城市化与微生物多样性下降有关,可能与加工食品摄入增加、污染物暴露、抗生素使用和久坐生活方式有关。工业化则进一步加剧这种趋势,因为农业实践中常使用抗生素和农药,而这些因素可能扰乱微生物生态。
城市,可能通过我们吃什么、吸入什么、接触什么、缺少什么,来改变身体里的微生物环境。
一个长期生活在城市中的人,接触最多的可能不是土壤、植物、动物和开放空气,而是建筑材料、空调系统、办公桌面、地铁扶手、消毒剂、塑料包装食品、汽车尾气、噪音、屏幕。
现代生活的微生物暴露,换了一种结构。我们并不是不接触微生物,而是更少接触自然环境中复杂、多样、共同演化的微生物。
室内化生活,离土壤越来越远
城市生活最明显的特征之一,是人的生活越来越室内化。
我们接触的是空调过滤后的空气、人工清洁过的地面、被消毒剂反复处理的桌面、长期封闭的房间和高度重复的人群流动。这样的环境当然减少了许多病原风险,但也可能减少了来自土壤、植物和自然空气的微生物多样性输入。
编辑
城市化与人体共生微生物多样性下降有关;尤其在生命早期,分枝杆菌(Mycobacteria)、乳杆菌等微生物暴露可能减少。这些变化可能影响免疫调节回路的正常发育,削弱调节性T细胞和调节性巨噬细胞的活性与功能,最终导致免疫失调。
这不是说这些微生物或生物暴露越多越好,也不是要回到低卫生水平的过去。
现代城市带来了清洁饮水、污水处理、医疗系统、疫苗、抗生素、食品供应和公共卫生,这是人类寿命延长的重要基础。城市让我们更安全,也让我们更单一。
早期生命需要与外部环境进行某种免疫训练。自然暴露减少,可能意味着身体少了一部分与世界共同训练免疫系统的机会。最好是在病原控制和生态多样性之间找到新的平衡。
“玩泥巴”也有利于健康?接触环境微生物群可能调节肠道菌群和免疫系统
绿地:城市里的微生物入口
在城市里,自然暴露并没有完全消失。公园、绿地、树木、草地、土壤、社区花园、河岸、户外活动等,仍然是城市居民接触环境微生物的重要入口。
研究显示,农村人群通常有更高的微生物多样性,这可能与传统饮食和更接近自然环境的互动有关。
“生物遗传学”假说表明,在自然环境中定期、间歇性接触空气中的生物化合物混合物,会抑制高度互联的PI3K/Akt/mTORC1信号通路。这抑制了相关的病理途径,有益于身心健康。
城市绿地并不等同于乡村自然。但它至少提供了一种补偿:在高度室内化、人工化、消毒化的城市生活中,绿地让身体重新接触到一部分外部生态复杂性。
编辑
从微生物组视角看,绿地的存在,也是城市居民接触环境微生物的重要界面。
环境污染物通过肠脑轴影响心理健康,精神益生菌或将发挥重要作用
城市不是微生物组问题的终点。
同一座城市里,有人靠近公园、绿地和新鲜食物;也有人长期暴露于高架桥、噪音、污染、加工食品、通勤和高压工作。
城市暴露从来不是平均分配的。于是,问题从城市如何塑造身体,进一步到了:不同阶层的人,究竟生活在怎样不同的微生物世界里?
微生物组不是只属于个人身体,不只关乎个人如何生活,它也关乎一个社会如何安排生活。
不同生活条件,会进入菌群结构
微生物组研究提醒我们,阶层也可能以更隐蔽的方式进入身体。
收入、教育和医疗可及性的差异,会影响微生物健康;尤其是童年时期的社会经济地位,可能对成年后的肠道微生物组成产生长期影响。研究显示,较低的父母教育水平和较低的当前社会经济地位,与拟杆菌属丰度降低有关。
拟杆菌属是人体肠道中非常重要的一类菌属,参与代谢、免疫和肠道屏障功能调节。它与克罗恩病和酒精性肝病等疾病存在密切关联。
吃什么,住哪里,睡多久,压力有多大,看病是否方便,是否有时间运动,是否有机会接触自然,是否从小就拥有稳定、安全、营养充足的生活环境。这些东西最终都可能在身体内部留下痕迹。
健康建议,也要落到现实里
我们常听到,要少吃糖,少吃油,多吃蔬菜,多吃全谷物,多运动,少熬夜,保持自律…这些建议本身没有错。
问题在于,它们默认每个人都拥有同等质量的选择条件。
事实上,不是每个家庭都有时间计划饮食、做饭、储存食材、研究营养搭配等。
这也是为什么把健康完全解释为个人自律,是不够完整的。
个人选择很重要,但选择本身也需要条件。一个人能否长期吃得更好、睡得更稳、动得更多、少滥用抗生素、及时获得医疗帮助,并不只取决于意志力,也取决于他所处的生活结构。
公共条件,也在塑造身体微生态
卫生、住房和抗生素管理的政策,在塑造微生物生态系统中发挥作用。
例如,过度拥挤的住房增加了病原体传播风险,减少了接触多种环境微生物的次数,从而破坏微生物的稳态。更大的城市绿地促进了全年接触环境微生物群,这有利于健康。
抗生素过度使用通常在无节制获取或调控不佳的人群中更为常见,已被证明会减少有益微生物,并导致抗生素耐药菌株的出现。
此外,突发的经济危机还可能影响弱势群体的身心健康,从而激活慢性压力通路,并通过神经内分泌免疫轴对微生物稳态产生不利影响。
好的公共条件,可以让健康选择变得更容易。
这些都会在无形中改变一个人每天面对的选择质量。
文化也会塑造身体边界
文化看起来像观念、习俗和礼貌,但从微生物组角度看,它也是一套规定身体如何接触世界的规则:我们如何吃饭,是否共餐,是否共住,如何拥抱,是否握手,如何清洁,如何理解干净等。
编辑
围绕卫生、食物准备和身体接触的文化实践,会影响微生物共享和传播模式。在集体主义文化中,共同进餐和共享居住空间更常见,微生物交换可能高于更强调个体边界的社会。
这并不是说哪一种文化更好。
更多微生物交换,可能意味着更多样的暴露,也可能带来更高的病原传播风险;更强的个人边界,可能降低某些感染风险,也可能减少一部分日常微生物接触。
未来的微生物组研究和健康干预,也不能脱离文化语境。需要进行跨文化比较,研究不同文化规范如何影响微生物传播和多样性。
以上的讨论,并不是要否定个人努力,而是可以更友好地理解自己和他人:健康行为的形成,往往受到食物可及性、居住环境、工作时间、医疗资源、健康素养和社会支持等因素共同影响。
这并不意味着命运被环境决定。健康不是一场完美主义竞赛,不是责备一个人为什么没有立刻做到最好,而是帮助他找到在当下条件里最可行的一步。而微生物组,正是一个仍然可被调整、可被重新塑造的入口。
微生物组的意义,就在于它让我们同时看见这两件事:一方面,生活环境确实会进入身体;另一方面,身体仍然保留着被重新照顾、重新调整、重新建立平衡的可能。
健康不是控制身体,而是重建共生
写到最后,微生物组改变的,或许不止于我们对细菌这个维度的看法,而是我们对健康的理解。
过去,我们常把健康理解成一种控制能力:
编辑
于是,健康很容易变成一场紧张的自我管理:吃得够不够干净,睡得够不够早,运动够不够多,菌群够不够好。但微生物组提醒我们,生命并不是靠绝对控制维持自身的。
一个健康的身体,不是没有压力、没有情绪波动、没有外界环境影响的身体。恰恰相反,它是一个能够与无数微生物、食物、关系、环境和变化不断协同,并在其中维持动态平衡的开放系统。
那么,什么是我们值得追求的?
也许不是把身体打造成一个精密控制的运作机器,而是让它成为一个更有韧性的生态系统。
照护身体,放下焦虑,不必把每一次饮食失控、熬夜都理解成失败;不再把身体当成敌人,不再把健康变成对自己的审判。
编辑
微生物组的可塑性告诉我们,它会被压力扰动,也能够被稳定的节律修复;会被加工食品影响,也能够被更好的饮食慢慢调整;会被孤独消耗,也能够在支持性的关系里重新获得缓冲。
从这个角度看,照护微生物组,并不是简单地执行某一套饮食法,它更接近一种生活方式的重建,让日常生活重新出现可以恢复生机的空间:吃得更丰富一点,睡得更稳定一点,找合适自己的补剂,多接触自然,给压力出口,也对长期内耗的关系按下暂停,让身体少一点无谓的防御。
一个更健康的社会,也应该让健康选择变得更容易发生:让新鲜食物更可及,人们拥有更多健康食物或营养补剂的选择,城市保留适当的绿化,科学的医疗和健康知识更容易抵达普通人,人们拥有被支持、被理解、被照护的现实条件。
观察菌群的变化,是在理解它的变化之后,建立一种更松弛的安全感:知道哪里可以调整,哪里需要等待,通过更稳定的节律、食物、理想的关系、友善的生活环境,慢慢把身体带回平衡。
最终,微生物组告诉我们的,也许不只是科学事实,而是一种更谦卑的生命智慧:人不是孤岛,身体也不是孤城。我们活在万物之中,也被万物塑造。
健康,更像是一门共处的艺术:与体内无数微小生命共处,与自己的脆弱和限制共处,与他人、城市、自然和时代共处。
健康,也是一种活得更有弹性,更有连接,更能在复杂的世界里保留恢复平衡的能力。
主要参考文献
Li J, Yang Y, Wang Y, et al. Society and the Microbiome: A Biopsychosocial Window Into Comprehensive Well‐Being: A Review[J]. Health Science Reports, 2026, 9(5): e72162.
Song Y, Maley A, Boyineni J, et al. Effects of co-housing and social isolation on the gut microbiota[J]. Physiology & Behavior, 2025, 299: 114980.
Marin, I., Goertz, J., Ren, T. et al. Microbiota alteration is associated with the development of stress-induced despair behavior. Sci Rep 7, 43859 (2017).
Wu, WL., Adame, M.D., Liou, CW. et al. Microbiota regulate social behaviour via stress response neurons in the brain. Nature 595, 409–414 (2021).
Bashan, A., Gibson, T., Friedman, J. et al. Universality of human microbial dynamics. Nature 534, 259–262 (2016).
Fan J, Zhou Y, Meng R, et al. Cross-talks between gut microbiota and tobacco smoking: a two-sample Mendelian randomization study[J]. BMC medicine, 2023, 21(1): 163.