-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
刷牙时牙龈反复出血、口臭迟迟难以改善、明明认真刷牙却仍频繁发生龋齿,或是血糖、体重出现异常——这些看似彼此无关的健康问题,背后都可能与口腔微生态有关。
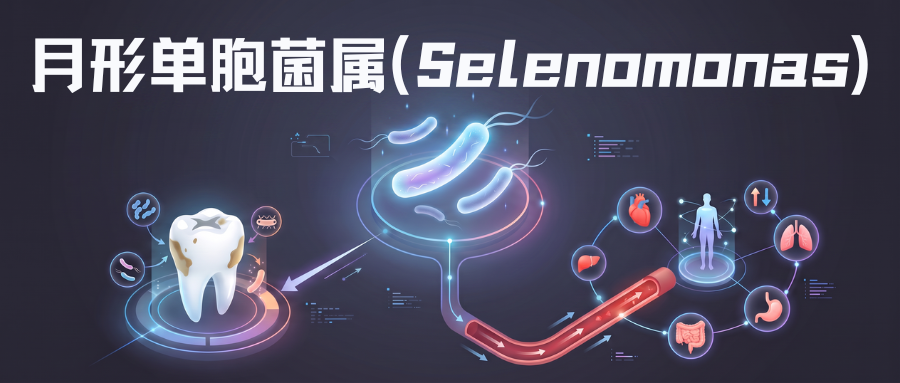
月形单胞菌属(Selenomonas)正是这样一类值得关注、却并不为大众熟悉的微生物。它们属于韦荣氏菌科(Veillonellaceae),是一类革兰氏阴性厌氧菌,细胞多呈弯曲杆状、新月形或肾形,能够运动。主要分布于人体口腔、胃肠道等低氧环境。尤其在龈下牙菌斑和牙周袋这类氧气稀少、营养丰富的微环境中。
月形单胞菌属(Selenomonas)不能被简单地定义为“有害菌”或“益生菌”。它在健康人群中可以是复杂微生物群落的普通成员;但当口腔卫生状况下降、菌斑生物膜逐渐成熟、局部炎症持续,或宿主本身存在易感因素时,某些种类可能成为推动疾病表型的条件致病菌。例如,Selenomonas noxia 在牙周炎人群中更易检出,并因能够产生硫化氢等代谢产物而可能与口臭、局部屏障损伤和炎症维持有关;Selenomonas sputigena 在儿童龋齿菌斑中增多,可与变异链球菌(Streptococcus mutans)协同构建更致密的生物膜,增强局部产酸和耐酸能力,促进牙釉质脱矿。
并且Selenomonas的影响不止于口腔,研究发现,Selenomonas noxia 与超重、肥胖相关;在类风湿关节炎和系统性红斑狼疮等慢性炎症性疾病中,也可观察到包括Selenomonas在内的疾病相关菌群富集。与此同时,在哮喘患者和自闭症谱系障碍患者中,观察到Selenomonas的相对丰度出现减少。
但是注意关联并不等于因果,本文将从月形单胞菌属(Selenomonas)的分类与形态、生长条件、人体定植特点、代谢能力及其与牙周炎、儿童龋齿等健康问题的关系出发,认识这类既普通又具有情境依赖性的微生物。
月形单胞菌属(Selenomonas)属于厚壁菌门下的Veillonellaceae(韦荣氏菌科)。是一类以严格厌氧、革兰阴性染色、弯曲/新月形、凹面丛生鞭毛和运动性为突出特征的细菌。它们可定植于动物瘤胃及人体口腔、胃肠道和呼吸道相关部位。
现有文献显示,该属并非可简单定义为“有害菌”或“益生菌”。其效应具有明显的:
✔ 物种特异性:如 S. noxia 与牙周炎、肥胖相关;S. sputigena 与儿童龋齿生物膜协同相关;
✔ 生态位特异性:龈下牙周袋、龈上牙菌斑、唾液、肠道和痰液中的作用可能不同;
✔ 群落依赖性:常作为条件致病菌,在单独存在时未必致病,但可在失衡微生态或与特定菌种协同时增强疾病表型;
1
分类与遗传信息
月形单胞菌属(Selenomonas)在分类学上属于厚壁菌门(Firmicutes)下的Veillonellaceae(韦荣氏菌科)。
注:有研究将Selenomonas等移至新建的 Selenomonadaceae 科下。但目前 NCBI Taxonomy 等数据库仍有沿用 Veillonellaceae 的情况,两版分类均在文献中被引用。
主要种包括:
Selenomonas noxia;
Selenomonas sputigena;
Selenomonas felix;
以及S. dianae、S. flueggei、S. infelix、S. artemidis等。
模式种:Selenomonas sputigena。
DNA G+C (mol%): 40–61。
2
细胞形态
•形态结构:细胞呈弯曲杆状、新月形或肾形,尺寸约 0.9–1.1 × 3.0–6.0 μm,两端圆润;不产生荚膜与芽孢。
doi: 10.1016/j.nmni.2019.100567.
•运动方式:在细胞凹面中央着生一束鞭毛(可达 16 根),呈线性排列,表现为典型的翻滚式运动。鞭毛驱动的运动可能有助于其在液体环境、龈沟液或生物膜表面迁移。
在龋齿模型中,S. sputigena 单独附着于牙面时保持运动性;与 S. mutans 共培养后,其可被后者产生的胞外α-葡聚糖基质捕获而失去运动性。葡聚糖水解酶降解该基质后,运动性恢复,表明这种限制是可逆的,并由生物膜基质介导。
•染色:革兰氏阴性。
3
生长环境
•专性厌氧
月形单胞菌属(Selenomonas)总体为专性厌氧菌,氧暴露会严重限制其生长和存活。因此,其主要生态位通常是氧分压较低的区域。
•温度
其最适生长温度为35–40℃,实验室常规培养通常设定在 37℃。最低生长温度约 20–30℃,最高生长温度约 45℃。
这一温度区间与其主要栖息环境(哺乳动物胃肠道、口腔等体温环境)相吻合。
•pH
月形单胞菌属的最适pH通常接近中性,为6.0–7.0;并且其具有一定耐酸性,可在pH 4.5–5.0的酸性环境中存活或生长,这可能有利于其在龋齿微环境和瘤胃等酸性生态位定植。
•不同来源菌株的营养生态差异
该属的代谢类型具有种间差异:
因此,不能将某一物种的培养条件或代谢能力直接推广至全属。
4
人群分布与定植特征
•口腔中的分布
月形单胞菌属(Selenomonas)可检出于:
来源:谷禾肠道菌群检测数据库
月形单胞菌属(Selenomonas)在牙周健康人群及谷禾口腔检测中通常检出量低或不可检出;随着牙龈炎症和牙周袋形成,其检出率及丰度增加。值得注意的是,即便在牙周炎位点,S. noxia 平均相对丰度通常仍较低,提示其可能不是“数量上占优势”的病原体,而可能通过特定代谢、生物膜或炎症效应参与疾病。
•年龄相关分布
影响因子:2.849
一项针对87名、7–17岁儿童和青少年的唾液qPCR研究发现S.noxia阳性率在不同年龄段间存在区别:
7–10岁——13.3%;
11–13岁——34.6%;
14–17岁——54.8%。
总体阳性率为34.4%(30/87),年龄组差异显著。这提示青春期阶段的激素变化、口腔卫生行为、饮食习惯、正畸治疗或牙周微环境变化,可能影响其获得和定植。
•牙周炎人群丰度高于牙周健康人群
在另一项成人研究中,III期重度牙周炎患者龈下S.noxia的检出率为53.4%(110/206),显著高于牙周健康者的20.8%(10/48)。其中,重度定植(每份样本≥106个细胞)的比例在重度牙周炎组为16.0%,而在牙周健康组仅为2.1%。总体而言,重度牙周炎组的 S. noxia 检出率约为健康组的2.6倍,重度定植比例约为7.6倍。
•胃肠道、呼吸道等其他部位
胃肠道:在人粪便宏基因组中检出率极低,但在部分肥胖人群中 S. noxia 可能随口腔-肠轴定植并参与纤维发酵。
呼吸道:健康人气道中低频存在;重度哮喘患者痰液中丰度显著下降,是非严重性哮喘与健康对照的潜在差异菌属。
5
代谢能力及影响
•发酵与短链脂肪酸产生
月形单胞菌属(Selenomonas)为化能有机营养型厌氧发酵菌,可发酵葡萄糖,并产生较高水平的乙酸、丙酸;可伴生少量乳酸、琥珀酸、H₂;是肠道/瘤胃重要的丙酸产生菌之一。
这些短链脂肪酸在肠道环境可能参与宿主—微生物代谢交流;但在牙周袋等局部高浓度、封闭性炎症环境中,可能具有细胞毒性或促进组织损伤的作用。
•产生硫化氢
S.noxia可产生较高水平的硫化氢(H₂S)。该代谢物具有:
•底物谱
Selenomonas可利用葡萄糖、甘露醇、蔗糖、乳酸、谷氨酸/天冬氨酸等。
注:部分研究提出 S. noxia 可能参与纤维素、膳食纤维或“难消化”碳水化合物的代谢,从而增加可获得能量,并与超重或肥胖相关。
6
抗菌药物敏感性
对S.noxia ATCC 43541的体外最低抑菌浓度(MIC)检测显示:
编辑
•解读与局限性
Selenomonas 在成熟生物膜中可能因基质屏障、低代谢状态和与其他菌共存而表现出较高“耐受性”;这与获得性遗传耐药并不完全相同。
临床牙周治疗不能仅根据单一菌种检出结果决定抗菌药物使用,应以机械清创、牙周临床评估和规范指南为基础。
7
与人体及其他菌群的互作
•与牙周组织和宿主炎症的关系
在牙周炎环境中,S. noxia 可在其他牙周相关厌氧菌释放的细胞因子、毒素及炎症产物存在的条件下生存。其可能通过以下途径参与病变:
然而,现有证据更支持其为牙周生态失衡中的候选参与者,而非已被单独证明的充分致病因子。
•与 Streptococcus mutans 的协同:儿童龋齿中的代表性机制
这是目前证据最完整的跨菌种互作之一。
互作过程:
互作后果:
•与其他菌群的关系
月形单胞菌属(Selenomonas)是一类主要定植于人体口腔、胃肠道等厌氧微环境的革兰阴性厌氧菌,其在健康状态下可作为复杂微生物群落的组成部分参与生态平衡。
然而,当局部微生态失衡、菌斑生物膜成熟或宿主易感性增加时,部分菌种可由共生成员转变为促进疾病发生的条件致病菌。例如,S. noxia 与牙周炎及肥胖相关表型存在关联;S. sputigena 则可与变异链球菌协同形成高致龋性生物膜,增强局部酸化和牙釉质脱矿。
月形单胞菌属在人体健康与疾病中的作用具有明显的情境依赖性,其致病潜能不仅取决于自身丰度,更与其所在生态位、微生物互作及宿主环境密切相关。下面让我们一起来了解,Selenomonas可能与哪些疾病的发生和发展存在相关性?
1
牙周炎
水平和相对丰度明显升高 ↑↑↑
编辑
影响因子:3.998
• Selenomonas在牙周炎中丰度明显增加
月形单胞菌属(Selenomonas)在牙周炎中升高是最一致的发现之一。Selenomonas sputigena是口腔厌氧菌,通常可见于唾液和龈下菌斑。在牙周健康状态下,其丰度相对较低;而在牙周炎,尤其是深牙周袋的龈下生物膜中,其检出水平和相对丰度明显升高。
既往研究也表明,S.noxia在牙周炎活动初期增多,并与进行性附着丧失相关。治疗后其水平仍较高者,可能更易出现疗效不佳或附着丧失继续进展。
严重牙周炎及牙周健康中Selenomonas的丰度水平
编辑
doi: 10.7759/cureus.83171.
•可能的作用机制
2
儿童龋齿
在龋齿儿童的牙菌斑中丰度显著升高 ↑↑↑
编辑
影响因子: 12.121
•S. sputigena 在龋齿儿童中丰度和转录活性均显著升高
在一项纳入416名学龄前儿童的研究中,研究者对龈上牙菌斑进行了宏基因组和宏转录组分析:发现队列300人、独立验证队列116人。Selenomonas sputigena在龋齿儿童的牙菌斑中丰度和转录活性均显著升高,并且这一关联在发现与验证队列中均得到支持。
•S.sputigena并非独立致龋菌,而是协同增强菌
S.sputigena 单独存在时,虽然能够在牙面定植、利用糖并产酸,却难以高效形成成熟的牙面生物膜;动物实验中,单独接种该菌也未明显增加龋损。其更准确的定位是条件致病共生菌:在变异链球菌存在的条件下,通过协同作用显著放大生物膜的致龋能力。
口腔微生物物种与龋齿的关联
编辑
doi: 10.1038/s41467-023-38346-3.
•增强糖代谢、产酸和耐酸性
龋齿相关菌斑的转录组显示,糖酵解等与产酸有关的通路上调,S. sputigena 是相关功能菌之一。体外实验进一步表明:
–S. sputigena 能利用蔗糖或葡萄糖产酸,也能在酸性环境中生长;
-与 S. mutans 共培养时,混合菌群的平均质子产生速率最高,且pH下降最快;
-两菌混合培养能在初始pH 5.2条件下生长,48小时后终末pH可降至约 3.9,低于 S. mutans 单独培养或其他混合菌组合;
-混合生物膜—牙釉质界面可形成pH<5.5的局部强酸区,达到促进牙釉质脱矿的条件。
混合培养中的代谢峰值仍主要由 S. mutans 驱动。因此,S. sputigena 的关键贡献并不只是自身产酸,更在于增强整体生物膜的局部酸化能力和耐酸性。
•加重牙釉质脱矿与龋损
在离体人牙釉质模型中,S. sputigena—S. mutans 混合生物膜造成的牙釉质表面粗糙度、矿物质丢失和酸蚀深度均显著高于S. mutans 单菌生物膜。若敲除 S. mutans 的 gtfB/gtfC 基因、阻断α-葡聚糖合成,或使用葡聚糖水解酶破坏胞外基质,则蜂窝状混合结构无法建立,局部强酸区也随之消失。
在啮齿动物模型中,S. sputigena 单独感染不能显著诱发龋齿;但与 S. mutans联合感染会显著增加总龋损和重度龋损,出现更广泛的牙釉质破坏和龋洞。
// 小结
儿童龋齿患者龈上牙菌斑中,Selenomonas sputigena 的丰度和活性升高。它本身不是充分致龋菌,却能借助 S. mutans 产生的α-葡聚糖基质实现牙面富集、运动性固定和局部增殖,进而形成包绕链球菌微菌落的蜂窝状三维结构。该结构促进糖代谢、增强产酸和耐酸能力,形成持续的低pH微环境,最终加重牙釉质脱矿及儿童龋齿严重程度。
3
超重与肥胖
•Selenomonas在超重和肥胖人群中检出率更高
编辑
影响因子:3.018
该研究通过qPCR检测122份儿童与成人唾液样本,发现牙周病原体(Selenomonas noxia)在超重和肥胖者中的检出率显著高于正常BMI者,提示其与体重异常存在关联。
编辑
S. noxia 在超重和肥胖者中更常检出:43例阳性者中,37例(86%)来自超重或肥胖组。
• 增加膳食能量获取的潜力
文献提出,S. noxia 可能具有降解纤维素及其他人体通常难以消化的膳食纤维的能力。若这种代谢功能在体内发挥作用,可能将原本难以利用的复杂碳水化合物转化为可吸收的代谢产物,从而提高单位食物摄入的能量回收效率,并可能促进长期体重增加。
•与牙周炎及低度炎症的共同关联
S. noxia 被视为牙周炎相关菌。超重和肥胖本身与牙周炎风险及慢性低度炎症有关;局部牙周炎症可能改变龈下或唾液微生态,反过来使 S. noxia 更易定植。因此,二者可能存在双向关系:肥胖相关代谢/炎症环境促进该菌富集,而该菌及相关牙周微生态失衡又可能参与炎症负担。
4
自身免疫相关疾病与炎症
编辑
影响因子:4.914
•持续炎症可使类风湿关节炎患者中S. noxia丰度升高
研究显示,在类风湿关节炎(RA)动物模型中,S.noxia、Parvimonas micra和Veillonella parvula水平升高。另有人体研究报告,即使RA患者没有临床牙周炎,其口腔菌群中仍可见S. noxia和S. sputigena等牙周相关菌富集。
RA相关的持续炎症可使牙周组织中TNF-α、IL-1、IL-6和IL-17升高,改变局部营养供给与低氧环境,进而有利于厌氧、疾病相关菌的定植。RA抗炎治疗后,口腔菌群失调可部分逆转,支持“宿主炎症驱动菌群变化”的解释。
全身健康状况对牙周组织和相关微生物群的影响
编辑
doi: 10.1177/0022034518805739.
•系统性红斑狼疮患者龈下S. noxia升高 ↑↑↑
系统性红斑狼疮(SLE)患者龈下菌群中S. noxia升高,且可见于牙周临床健康位点;同时,健康相关菌如Capnocytophaga、Rothia和Streptococcus减少。SLE患者通常还表现为更高的细菌负荷、更低的微生物多样性,以及疾病相关菌比例升高。
SLE的持续炎症、IL-6、IL-17和IL-33升高,以及口干或唾液减少等口腔环境改变,可能共同促进S.noxia等厌氧菌富集。炎症造成组织降解后释放的营养底物也可进一步支持这些菌的生长,形成“炎症促进菌群失调—失调菌群放大牙周炎症”的循环。
5
糖尿病相关
编辑
影响因子:3.742
•糖尿病患者中与S.noxia相关的牙周免疫反应增强
该研究未直接测定口腔中S. noxia的丰度,而是分析了8,153名≥40岁成人血清中针对S. noxia及另外6种牙周微生物的IgG抗体(“红—绿簇”)。最长27年随访显示,红—绿簇抗体水平较高者的糖尿病相关死亡风险增加86%。
因此,该结果提示长期牙周微生物暴露或增强的宿主免疫反应与风险升高相关,并不代表糖尿病患者口腔中S. noxia菌量增加,也不能证明该菌单独导致风险升高。
6
哮喘
在哮喘患者中丰度降低 ↓↓↓
编辑
影响因子:8.706
•Selenomonas随哮喘的严重程度出现递减趋势
研究通过对155名受试者(31名非哮喘对照、47名非重度哮喘、77名重度哮喘)的气道菌群分析,发现 Selenomonas 的丰度呈现出与疾病状态密切相关的递减趋势:
哮喘患者总体Selenomonas低于健康人:与非哮喘对照组相比,哮喘组气道中 Selenomonas 的丰度显著降低(ANCOM 方法分析显示显著差异)。
随哮喘严重程度加重而递减:在按严重程度分层比较中,重度哮喘患者气道中 Selenomonas 的相对丰度显著低于非重度哮喘患者及非哮喘对照组(ANOVA 及 OMiAT 方法均证实,校正后 p=0.011)。疾病越严重,其缺失越明显。
与菌群多样性正相关:在哮喘患者体内,Selenomonas 的丰度与 Alpha 多样性指数(Chao1 指数、Shannon 指数)呈显著正相关,但在非哮喘对照组中无此关联,提示其在维持哮喘气道微生态稳定中可能具有特定地位。
•可能通过调节TH2免疫来缓解哮喘炎症反应
减轻气道高反应性(AHR)与炎症细胞浸润:在小鼠哮喘模型中,致敏期经鼻给予Selenomonas sputigena(人痰液中占主导的 OTU,占比48%)处理后可:
-显著降低气道高反应性;
-减少支气管肺泡灌洗液(BALF)中的炎性细胞总数。
抑制2型炎症反应:流式细胞术分析显示,Selenomonas 处理显著降低了肺组织中分泌 IL-5 和 IL-13 的 TH2 细胞群比例。IL-5 与嗜酸性粒细胞活化、IL-13 与黏液高分泌及气道重塑密切相关,说明该菌可能通过调节 TH2 免疫偏向来缓解哮喘的 2 型炎症表型。
复杂的菌群互作作用:哮喘组(尤其是重度组)中存在以 Selenomonas 为中心的更复杂微生物关联;重度哮喘中显著负相关(竞争/抑制)的菌对数量增加。
这些提示 Selenomonas 可能在气道微生态网络中处于关键节点,其减少可能破坏菌群稳态,间接促进炎症环境。
7
自闭症谱系障碍 ↓↓↓
编辑
影响因子:3.998
•自闭症谱系障碍中Selenomonas丰度降低 ↓↓↓
该研究采用16S rRNA测序,比较了32名ASD儿童与27名年龄、性别和BMI匹配健康儿童的唾液及龈上牙菌斑,共111份样本。
ASD儿童牙菌斑中的 Selenomonas 相对丰度显著降低。并且 Selenomonas 的降低并非孤立现象,而是ASD儿童口腔菌群失调的一部分:
•ASD组的牙菌斑多样性、丰富度和均匀度降低;
•健康对照中相对富集的 Prevotella、Selenomonas、Actinomyces、Porphyromonas 和 Fusobacterium 在ASD中减少;
•牙菌斑中的 Streptococcus 增加,唾液中的 Haemophilus 增加;
因此,可以将 Selenomonas 视为ASD相关口腔生态失衡中减少的共生菌成员之一,但不能说Selenomonas减少是ASD的病因、后果或症状严重度的直接决定因素。
现有证据显示,Selenomonas. noxia在牙周炎、超重与肥胖及部分慢性炎症相关状态中更常被检出;Selenomonas. sputigena 则可与变异链球菌协同形成高致龋性生物膜,放大局部酸化和牙釉质脱矿造成龋齿。
另一方面,在重度哮喘气道和自闭症儿童牙菌斑中,Selenomonas 的减少又与菌群多样性下降或生态失衡并存。这些看似不同的结果恰恰说明:丰度升高或降低本身并不等于致病或保护,关键在于它处于怎样的生态环境、与哪些微生物互作,以及宿主身体处于何种状态。
因此,面对与Selenomonas有关的研究,更合理的态度不是“消灭某一种菌”,而是重视整体口腔和微生态健康:坚持有效刷牙与清洁牙缝、定期进行口腔菌群检测、口腔健康检查和牙周评估、减少高糖饮食,并同步管理体重、血糖及慢性炎症等问题。对于已经存在牙周病或反复龋齿的人群,规范的机械清创和个体化临床治疗仍是基础,不宜仅凭口腔菌种检测结果自行使用抗菌药物。
未来,还需要更大规模的纵向人群研究,以及物种和功能层面的实验,进一步厘清Selenomonas究竟是疾病进程的参与者、微生态失衡的标志,还是在特定条件下具有调节作用的关键节点。认识这类“小众菌”的价值,正在于帮助我们从一颗牙、一个菌斑,看到口腔微生态与全身健康之间更复杂也更值得重视的联系。
主要参考文献
Hespell, R.B., Paster, B.J., Dewhirst, F.E. (2006). The Genus Selenomonas . In: Dworkin, M., Falkow, S., Rosenberg, E., Schleifer, KH., Stackebrandt, E. (eds) The Prokaryotes. Springer, New York, NY.
Drescher J, Schlafer S, Schaudinn C, Riep B, Neumann K, Friedmann A, Petrich A, Göbel UB, Moter A. Molecular epidemiology and spatial distribution of Selenomonas spp. in subgingival biofilms. Eur J Oral Sci. 2010 Oct;118(5):466-74.
Cho H, Ren Z, Divaris K, Roach J, Lin BM, Liu C, Azcarate-Peril MA, Simancas-Pallares MA, Shrestha P, Orlenko A, Ginnis J, North KE, Zandona AGF, Ribeiro AA, Wu D, Koo H. Selenomonas sputigena acts as a pathobiont mediating spatial structure and biofilm virulence in early childhood caries. Nat Commun. 2023 May 22;14(1):2919.
McDaniel J, McDaniel S, Samiano BJ, Marrujo M, Kingsley K, Howard KM. Microbial Screening Reveals Oral Site-Specific Locations of the Periodontal Pathogen Selenomonas noxia. Curr Issues Mol Biol. 2021 Jun 12;43(1):353-364.
Williams A, Porter J, Kingsley K, Howard KM. Higher Prevalence of the Periodontal Pathogen Selenomonas noxia among Pediatric and Adult Patients May Be Associated with Overweight and Obesity. Pathogens. 2024 Apr 19;13(4):338.
Nagpal D, Prakash S, Bhat KG, Singh G. Detection and comparison of Selenomonas sputigena in subgingival biofilms in chronic and aggressive periodontitis patients. J Indian Soc Periodontol. 2016 May-Jun;20(3):286-91.
Qiao Y, Wu M, Feng Y, Zhou Z, Chen L, Chen F. Alterations of oral microbiota distinguish children with autism spectrum disorders from healthy controls. Sci Rep. 2018 Jan 25;8(1):1597.
Rams TE, Hawley CE, Whitaker EJ. Subgingival Prevalence and Antibiotic Susceptibility of Selenomonas noxia. Cureus. 2025 Apr 29;17(4):e83171.
Hawkes CG, Carroll BO, Moylan AD, Stiker MEJ, Wang T, Serrano MG, Ridlon JM, Miller DP. Genomic and phenotypic insights into the novel species Selenomonas lamontii type strain ATCC 33150, currently described as Selenomonas sputigena. Microbiol Spectr. 2026 Jul 7;14(7):e0034126.
Deng ZL, Szafrański SP, Jarek M, Bhuju S, Wagner-Döbler I. Dysbiosis in chronic periodontitis: Key microbial players and interactions with the human host. Sci Rep. 2017 Jun 16;7(1):3703.
Hendricks K, Hatch T, Kingsley K, Howard KM. Screening for Selenomonas noxia in a Pediatric and Adolescent Patient Population Reveals Differential Oral Prevalence across Age Groups. Int J Environ Res Public Health. 2024 Mar 23;21(4):391.
Graves DT, Corrêa JD, Silva TA. The Oral Microbiota Is Modified by Systemic Diseases. J Dent Res. 2019 Feb;98(2):148-156.
Hawkes CG, Hinson AN, Vashishta A, Read CB, Carlyon JA, Lamont RJ, Uriarte SM, Miller DP. Selenomonas sputigena Interactions with Gingival Epithelial Cells That Promote Inflammation. Infect Immun. 2023 Feb 16;91(2):e0031922.
Kuete E, Mbogning Fonkou MD, Mekhalif F, Anani H, Baudoin JP, Raoult D, Bou Khalil JY. Selenomonas felix sp. nov., a new bacterium isolated from human sputum. New Microbes New Infect. 2019 May 29;31:100567.
Kim YC, Choi S, Sohn KH, Bang JY, Kim Y, Jung JW, Kim HY, Park J, Kim K, Kang MG, Yang MS, Kim S, Kim SH, Choi JH, Park HJ, Lee SM, Kim SH, Park JW, Lee JM, Cho SH, Won S, Yi H, Kang HR. Selenomonas: A marker of asthma severity with the potential therapeutic effect. Allergy. 2022 Jan;77(1):317-320.
Merchant AT, Vidanapathirana N, Yi F, Celuch O, Zhong Z, Jin Q, Zhang J. Association between groups of immunoglobulin G antibodies against periodontal microorganisms and diabetes-related mortality. J Periodontol. 2022 Jul;93(7):1083-1092.