-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
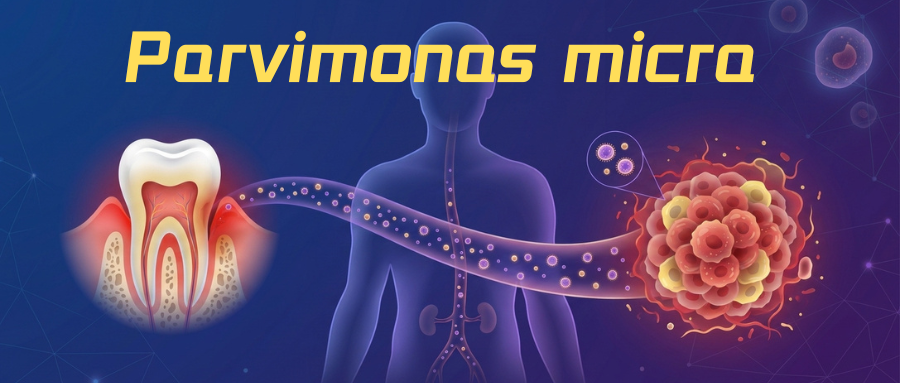
微小小单胞菌(Parvimonas micra)是一种革兰氏阳性、无芽孢、无运动性的专性厌氧球菌,也是 Parvimonas 属的模式种。
它在健康人群中通常以低丰度定植于口腔及胃肠道等黏膜部位,对低氧、炎症和屏障受损的微环境表现出明显适应性,因此常被视为连接黏膜共生状态与炎症相关疾病的重要条件致病菌。
与以糖发酵为主的细菌不同,P. micra 主要利用蛋白质和氨基酸获取能量,并以乙酸等代谢产物为代表;其黏附、侵入宿主细胞、调节炎症信号及与其他口腔致病菌形成协同生物膜的能力,使其在牙周炎、牙源性感染及部分深部感染中具有重要作用。
近年来,P. micra 在结直肠癌、口腔鳞状细胞癌和食管鳞状细胞癌等疾病相关样本中的富集现象,以及其菌株间毒力与耐药相关差异,也进一步提示:理解其生态位适应、代谢特征和宿主—菌群互作机制,对识别临床风险线索及探索干预靶点具有重要意义。
微小小单胞菌(Parvimonas micra)属于厚壁菌门(Firmicutes)下的Tissierellia纲,是Parvimonas属的模式种。
细胞形态
• 革兰氏阳性、专性厌氧,形态为球菌。
• 细胞直径大约 0.3–0.7 μm,常见分布是成对、链状或团块状。
• 不产芽孢、无运动性。
• 菌落一般为圆形、边缘整齐、乳白或灰色、表面光亮、隆起,并可见明显琥珀/黄褐色晕圈,且表现为β-溶血。
生长环境(生态位偏好)
• 适宜温度:37℃为其生长的最适温度。
• 厌氧生态位: P.micra是挑剔的专性厌氧菌,因此它更容易在低氧或无氧环境(深牙周袋、坏死组织、肠黏膜层)里生存。
• 炎症相关菌:P.micra被反复描述为一种炎症相关性病理共生体。当组织发生炎症、渗出增加、屏障被破坏时,它更容易富集并“站稳”。因而在很多宏基因组/扩增子研究中,它常常在慢性或急性炎症相关的黏膜部位出现更高丰度。
人群中的分布
• 健康状态下:往往丰度较低,是人体多个黏膜部位的常见组成菌,主要栖居于口腔,其次为胃肠道,亦可见于呼吸系统和女性泌尿生殖道。
• 口腔疾病:在牙周炎与牙源性感染中更易富集,并与疾病存在及严重程度相关;牙周炎病灶、感染根管及牙源性脓肿等部位尤为明显。
doi: 10.1002/1878-0261.13506.
• 系统感染(菌血症/深部感染):在“P. micra 单菌感染的病例报告与系统综述”中,最常见深部感染包括:脊柱椎间盘炎、关节炎,其次是硬膜外/腰部脓肿与感染性心内膜炎、慢性肺脓肿等。
重要危险因素:恶性肿瘤、糖尿病、关节置换术后等。
这带来的临床线索可能是:P. micra 可能长期在口腔/肠道作为低丰度共生菌存在,但当个体进入“免疫受损 + 屏障破坏”状态时,它可能从黏膜进入血流并导致深部感染。
遗传信息
• 基因组大小约 1.53–1.76 Mb。
• GC含量约 27.9–29.1 mol%。
• 部分菌株适应能力较强:研究者在 JM503A 菌株中发现它具有所谓的自然感受态特征,也就是它更容易从周围环境中“抓住并接收”外来的遗传物质;因此它在获得新功能(比如耐受性、代谢或适应性相关变化)方面可能更有优势。
代谢能力
• 核心能量策略:蛋白/氨基酸 → 乙酸
P. micra 不发酵任何糖类(葡萄糖/乳糖/蔗糖/核糖),而主要依赖蛋白与氨基酸发酵,产物中以乙酸为主要代表,以及微量丁酸和丙酸。
• 硫化氢(H₂S)与炎症
研究发现,在口腔相关菌群中,P. micra 被认为是硫化氢(H₂S)生成能力较强的菌种之一。因此其可能也与口臭有关。
由于 H₂S 可能与炎症强度、细胞毒性、肿瘤微环境调制相关,它为“炎症—代谢—生态重塑”的连锁机制提供了一个解释框架。
• 炎症灶的“营养-免疫双重驱动”
研究强调P. micra的致病生态位与其蛋白降解能力有关:炎症渗出会带来更多蛋白底物,它能把这些底物转化,同时也可能参与组织层面的损伤与免疫过程重塑。
注:基因组层面有“胆汁水解”相关的观察,但并非所有菌株一致具备。
• 常见酶特征
碱性磷酸酶阳性、吲哚酶阴性、过氧化氢酶阴性、尿素酶阴性。
耐药性
影响因子:3.893
• 对多西环素与克林霉素耐药显著上升
一项针对牙周致病P. micra的研究比较2006与2016年临床菌株体外耐药变化(300名重度牙周炎患者来源)显示:
多西环素耐药率:0.3% → 11.3%,显著上升。
克林霉素耐药率:2.0% → 47.3%,显著上升。
阿莫西林与甲硝唑:整体耐药率较低,且变化不显著。
• 耐药基因谱存在菌株特异性
基因组比较研究发现:通过数据库预测可见多个附属耐药基因,并存在显著的菌株间差异。例如:
tet(M)(与四环素类抗性相关的核糖体保护机制)在部分菌株出现。
ParC(DNA拓扑异构酶IV相关亚基)在特定菌株出现并与喹诺酮类抗性关联。
catA / catA11-A14 / catP等与氯霉素灭活相关基因在特定“疾病相关亚群”中富集。
研究还指出:存在外排泵/重金属抗性相关基因等,可能与多重耐受/多重耐药的背景生态有关。
注意:基因组预测不等同于所有基因必然表达、也不直接等价于临床抗生素耐药性;但它能解释“为什么耐药谱会在不同菌株/亚群中呈现异质性”。
P. micra与人体的互作
• 触发炎症信号
P. micra 基因组DNA可作为 TLR-9 激动剂,在牙龈成纤维细胞中促进 TNFα 与 IL-6等产生。
细胞壁组分可在巨噬细胞中诱导 TNFα、IL-8、IL-6、IL-1β、趋化因子 ( Rantes )等炎症因子,并可诱导与组织损伤相关的 MMP-9。
• 免疫逃逸与协同增强
在动物感染模型与多菌协同研究里,有证据提示 P.micra 可能通过降低活性氧(ROS)、损害吞噬功能等方式帮助自己或群落成员逃避天然免疫。
其免疫逃逸能力还能在与Fusobacterium nucleatum、Parvotella intermedia、Streptococcus intermedius等协培养时进一步增强。
另外还有“结合IgG Fc片段以减少局部调理素(opsonins)”的机制,从而抑制该群落内其他菌的吞噬清除。
与其他菌群的相互作用
P. micra 在口腔多种失衡生态中常常不是“单独作恶”,而是通过共聚集/营养交换/毒力放大/生物膜保护成为“关键协同成员”。
• 共聚集与可作为底物/基质
在体内与体外实验中,P. micra 与口腔上皮细胞有直接物理关联,且其黏附能力与细胞表面胞外多糖有关。
其可与多种口腔病理相关菌发生共聚集或互作,例如可与 Treponema denticola共聚集,并作为后者黏附的底物。
也可与 P. gingivalis与 F. nucleatum共聚集,且协培养时彼此可通过可溶性因子增强生长。
• 生物膜协同耐受
在 P. micra + F. nucleatum 的混合生物膜模型中,相比单一菌株生物膜,两个菌都表现出对次氯酸钠处理的敏感性下降,且该协同耐受随生物膜年龄增加而更明显。
• 毒力因子放大
P. micra可显著刺激P. gingivalis的生长并促进其产生牙龈蛋白酶(Gingipains)。
在包含多物种的体外模型中,即使体系中已有很多菌,gingipain活性仍可被P. micra特异性增强;例如双菌共培养 P. gingivalis–P. micra相较于P.gingivalis单独培养,gingipain活性可出现 >35倍提升。
这说明:P. micra不仅“能活在炎症里”,还可能通过互作把其他机会致病菌的毒力表达推向更高水平,从而使生态失衡。
健康状态:低丰度
P. micra 在健康条件下的丰度通常较低,主要存在于口腔/胃肠道黏膜生态中。
1
与牙周炎相关—患者中富集
编辑
影响因子:5.736
◮ P.micra在牙周炎患者中检出水平更高
研究发现,P.micra在牙周炎患者中呈现“炎症位点富集”,相较健康对照,它在牙龈沟液等牙周炎相关样本中的检出水平更高。
同时,研究在大鼠牙周炎模型中验证了其致病潜力:当P. micra相关作用发生时,牙周炎相关组织损伤表型会加重。
谷禾的口腔菌群检测数据库同样提示,P. micra 在牙周炎患者中的检出丰度更高。
编辑
◮ 为什么P. micra升高与加重牙周炎有关?
该牙周炎研究给出了相对具体的分子与细胞机制,可归纳为“入侵 + 逃避免疫/溶酶体清除 + 破坏成骨/免疫稳态”三条主线。
A.促进定殖后“进入宿主细胞/组织深处”:
研究提出,P. micra 可通过表面相关机制实现对宿主细胞的侵入,关键参与因素包括:TmpC(介导/参与细菌通过宿主通路进入或黏附并促进细胞内侵入的过程)。
B.逃避免疫清除—绕过溶酶体消除、干扰自噬相关清除:
该研究进一步指出,P. micra 能规避溶酶体消除,从而实现免疫逃逸。关键分子包括:AppA(与绕过溶酶体清除相关的机制要点)。同时,研究还强调其借助表面蛋白干扰宿主的自噬清除,使细菌得以存活并持续引发炎症与组织损伤。
C.重塑牙周炎微环境—激活炎症通路、抑制成骨分化:
P. micra 通过结合牙周韧带干细胞/相关受体,影响其功能,表现为:
-激活 NF-κB 与 ERK1/2 等信号通路;
-破坏牙周的免疫稳态(促进炎症环境维持);
-抑制成骨相关活性(从而不利于组织修复/加重破坏)。
2
其他口腔疾病—感染根管、根尖周炎
编辑
影响因子:6.574
P. micra在龈下微环境中可与牙龈卟啉单胞菌(P. gingivalis)等红色复合体致病菌进行”交叉对话”,驱动炎症、牙龈出血和牙周组织破坏,还被发现与以下口腔疾病相关。
①感染根管:与牙周病相关菌群高度重叠
在根管感染与急性牙源性感染中,NGS与培养往往能鉴定出与牙周炎相同的一组厌氧/机会致病菌,包括 Parvimonas 属(以及 Fusobacterium、Prevotella、Treponema、Porphyromonas 等)。在此背景下,P. micra 被指出为在牙周炎病灶与感染根管中常被检测到、且是优势/高比例成员之一。
②牙源性脓肿(尤其根尖周脓肿/急性牙源性感染)
P. micra 也会出现在急性牙源性感染相关的多微生物群落中(例如根尖周脓肿)。在这些感染中,P.micra 受益于炎症环境的营养与选择压力,并强调口腔疾病往往由多微生物协同驱动,而非单菌即可解释。
③根尖周慢性炎症
P. micra 在无病状态多为低丰度,而在慢性炎症/组织破坏环境中更易富集。根尖周慢性炎症本质上也是长期炎症与组织破坏并存的生态位,因此P.micra 更可能在该生态位中被“筛选出来”,从而影响慢性炎症维持与进展。
3
结直肠癌—患者中丰度升高
编辑
影响因子:6.126
编辑
影响因子:7.74
编辑
影响因子:7.971
◮ P. micra在结直肠癌患者粪便和肿瘤组织中丰度升高
多项研究发现,Parvimonas micra在结直肠癌(CRC)中的总体模式是:相较健康人群,CRC患者的粪便或肿瘤组织中其丰度升高;且“肿瘤组织富集”对预后关联更强。
大样本队列(309例粪便、165例结肠活检)显示:CRC患者的粪便与结肠活检中 P. micra 显著富集。
qPCR粪便检测研究(CRC患者38例、癌前病变/异常增生128例、对照63例)同样发现:CRC组的粪便中 P. micra 水平显著更高。
◮ 肿瘤组织中P. micra较高与预后较弱相关
在一项纳入257例结直肠癌(CRC)患者的研究中,作者发现肿瘤组织中较高的 P. micra 水平与5年肿瘤特异性生存下降相关。
同一研究指出:粪便样本中观察到的与预后相关性较弱。这支持这样一种理解:P. micra 更可能通过在肿瘤微环境中的定殖/作用参与疾病进展,而不是仅作为“远端排出物”的被动标志。
◮ “菌株/分型差异”:可能决定“真实致病力”
研究还强调 P. micra 的致癌促进作用可能呈菌株依赖性,并非所有分离株都同等强势;例如与致病进展相关的关键毒力因子在不同株中可呈差异表达。
◮ P. micra影响结直肠癌的可能机制?
P. micra 可能通过以下这几条机制影响结直肠癌:
1) 促进肿瘤发生/进展:增强上皮细胞增殖 + 调控Th17免疫轴;
2) 表观遗传重编程:诱导关键肿瘤抑制基因的DNA甲基化改变;
3) 关键毒力因子SirTM:ADP-核糖基转移酶触发H2B ADP-核糖化并激活促肿瘤转录信号;
4) “炎症性失衡生态位”使其更易定殖/共同参与多菌共生致病。
编辑
doi: 10.1016/j.jare.2026.03.035.
一句话总结:结直肠癌(CRC)患者中 Parvimonas micra 在粪便和肿瘤组织中通常显著升高;且肿瘤组织富集与更差生存更一致。
4
口腔鳞状细胞癌患者中富集
编辑
影响因子:12.121
◮ P. micra在口腔鳞状细胞癌组织中显著富集
研究发现Parvimonas micra在口腔鳞状细胞癌(OSCC)组织中显著富集,并且其丰度与肿瘤转移以及分期呈正相关;在体内外实验中,P. micra 可通过诱导缺氧/HIF-1α、促进糖酵解并激活自噬,从而增强OSCC的迁移、侵袭及淋巴结转移。
P. micra在OSCC组织中富集,并与OSCC转移相关
编辑
doi: 10.1038/s41467-025-62180-4.
◮ P. micra增强OSCC的迁移、侵袭
机制上,P. micra表面黏附素TmpC可与OSCC中过度表达的受体CKAP4结合,进而通过CKAP4-RanBP2轴稳定HIF-1α、并通过CKAP4-NBR1轴促进自噬通量;阻断CKAP4(使用马西替尼或抗体)可降低细菌附着与侵袭,并在体内外显著抑制P.micra促转移作用。
P. micra促进OSCC转移机制的示意图
编辑
doi: 10.1038/s41467-025-62180-4.
研究提示TmpC-CKAP4轴可能是OSCC淋巴结转移的潜在治疗靶点,并将P. micra确立为推动OSCC转移的重要肿瘤内病原体之一。
5
食管鳞状细胞癌患者中富集
编辑
影响因子:13.116
◮ P. micra在食管鳞状细胞癌组织中富集
该研究探讨了肿瘤内微生物群在食管鳞状细胞癌(ESCC)中的作用机制。对119例ESCC肿瘤与邻近正常组织进行宏基因组测序,并结合45例样本的单细胞转录组,发现厌氧口腔来源菌 Parvimonas micra在肿瘤组织中显著富集,且与不良预后相关;其丰度同时与肿瘤微环境中调节性T细胞(Treg)浸润增加呈正相关。
◮ P. micra诱导Treg分化与免疫抑制
进一步通过细胞与动物实验揭示:P. micra 通过分泌氨基酸发酵代谢物 p-cresol(对甲酚)(并包括其衍生物)提高CD4+ T细胞中的活性氧(ROS),进而诱导FOXP3+ Treg分化与免疫抑制,从而促进肿瘤生长;此外,ROS清除剂NAC可逆转该效应。
肿瘤富集细菌物种的鉴定及其在ESCC中的预后相关性
编辑
doi: 10.1126/sciadv.ady1644.
研究为“肿瘤内微生物—代谢物—免疫抑制—肿瘤进展”的机制链条提供了证据,并提示其对预后评估及联合治疗策略的潜在价值。
6
炎症感染与菌血症
◮ P. micra有时会导致菌血症
Parvimonas micra 在某些情况下可能引起菌血症。从发现菌血症的研究来看:
入侵部位往往与口腔感染/操作有关,且高龄、糖尿病、肿瘤等危险因素显著集中。
常见深部感染包括脊柱椎间盘炎、关节炎、硬膜外/腰部脓肿、感染性心内膜炎等。
◮ 肺脓肿
2019年1月至2020年7月浙江大学医学院附属第一医院收治的5例“与微小小单胞菌(Parvimonas micra)相关的慢性肺脓肿”。患者多为老年男性且有吸烟史、部分合并牙周炎。
◮ 脊柱椎间盘炎
还有研究报告了两例由Parvimonas micra引起的脊柱椎间盘炎(spondylodiscitis)。
总体而言,P. micra 的核心特点可概括为“低丰度定植、炎症环境富集、厌氧代谢适应与多菌群协同”。作为口腔和胃肠道等黏膜生态系统中的常见成员,它在健康状态下并不一定意味着疾病;但当局部氧张力下降、组织屏障破坏或宿主免疫功能受损时,其可借助氨基酸发酵、黏附侵入、炎症诱导及免疫逃逸等特性获得定殖优势,并参与组织损伤和感染进展。
现有资料显示,P. micra 不仅与牙周炎、感染根管、牙源性脓肿及菌血症相关,也在多种消化道和头颈部肿瘤相关样本中呈富集趋势。需要强调的是,其致病潜力、耐药相关基因与临床表现存在菌株差异,基因组预测亦不能直接等同于临床耐药性或因果作用。
因此,后续研究与临床解读应结合菌株分型、宿主背景、共生菌群结构及功能实验,审慎评估其作为疾病风险标志物、机制研究对象和潜在干预靶点的价值。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Li Z, Wang P, Gao H, Zhi M, Gu X, Sun T, Wang Y, Shen S, Ma X, Ji X, Zhang X, Liu D, Feng Q. Parvimonas micra exacerbates periodontitis by infiltrating host cells through TmpC and circumventing lysosomal elimination via AppA. EBioMedicine. 2026 Mar;125:106187.
Isola G. From dysbiosis to cellular invasion: reassessing the pathogenic role of parvimonas micra in periodontitis as an understudied pathobiont. EBioMedicine. 2026 Apr;126:106202.
Li JW, Wyllie RM, Jensen PA. A Novel Competence Pathway in the Oral Pathogen Streptococcus sobrinus. J Dent Res. 2021 May;100(5):542-548.
Ternes D, Karta J, Tsenkova M, Wilmes P, Haan S, Letellier E. Microbiome in Colorectal Cancer: How to Get from Meta-omics to Mechanism? Trends Microbiol. 2020 May;28(5):401-423.
Higashi DL, Krieger MC, Qin H, Zou Z, Palmer EA, Kreth J, Merritt J. Who is in the driver’s seat? Parvimonas micra: An understudied pathobiont at the crossroads of dysbiotic disease and cancer. Environ Microbiol Rep. 2023 Aug;15(4):254-264.
Qi H, Gao H, Li M, Sun T, Gu X, Wei L, Zhi M, Li Z, Fu D, Liu Y, Wei Z, Dou Y, Feng Q. Parvimonas micra promotes oral squamous cell carcinoma metastasis through TmpC-CKAP4 axis. Nat Commun. 2025 Mar 7;16(1):2305. doi: 10.1038/s41467-025-57530-1. Erratum in: Nat Commun. 2025 Jul 25;16(1):6856.
Guo S, Cao M, Wu J, Ma W, Liang D, Xie H, Xie Y, Luo Z, Lai P, Liu D, Zeng W, Zheng J, Xing M, Yin X, Xia M, He Z. Parvimonas micra promotes carcinogenesis of colorectal cancer through phenyllactic acid-induced DNA damage. Clin Transl Med. 2026 May;16(5):e70667.
Cheng G, Jiang X, Zhu L, Chen X, Liu R, Zhu L, Hu X, Zhang S, Tan W, Lin D, Zhang L, Wu C, Li M. Intratumoral Parvimonas micra promotes esophageal squamous cell carcinoma via p-cresol-induced Treg differentiation. Sci Adv. 2026 Feb 20;12(8):eady1644.
Chang Y, Yang C, Hou F, Zhu Y, Huang Z, Wang L, Liu Y, Zhang H, Qin X, Hao Z, Li D, Tan Y, Bai Y, Ding L, Gao H, Zhi F, Zhang F, Bi Y, Yang R. Parvimonas micra-derived SirTM: An ADP-ribosyltransferase as a novel driver in colorectal cancer progression. J Adv Res. 2026 Mar 17:S2090-1232(26)00256-0.
Conde-Pérez K, Buetas E, Aja-Macaya P, Martin-De Arribas E, Iglesias-Corrás I, Trigo-Tasende N, Nasser-Ali M, Estévez LS, Rumbo-Feal S, Otero-Alén B, Noguera JF, Concha Á, Pardiñas-López S, Carda-Diéguez M, Gómez-Randulfe I, Martínez-Lago N, Ladra S, Aparicio LA, Bou G, Mira A, Vallejo JA, Poza M. Parvimonas micra can translocate from the subgingival sulcus of the human oral cavity to colorectal adenocarcinoma. Mol Oncol. 2024 May;18(5):1143-1173.
Cenicacelaya Olabarrieta X, Cabello Vallejo M, Morell-Hita JL, Macía-Villa C. Case Report and Literature Review of Parvimonas micra: Difficult-to-Treat Arthritis in Hiding. Healthcare (Basel). 2023 Nov 1;11(21):2879.
Khan MS, Ishaq M, Hinson M, Potugari B, Rehman AU. Parvimonas micra bacteremia in a patient with colonic carcinoma. Caspian J Intern Med. 2019 Fall;10(4):472-475.
Löwenmark T, Löfgren-Burström A, Zingmark C, Ljuslinder I, Dahlberg M, Edin S, Palmqvist R. Tumour Colonisation of Parvimonas micra Is Associated with Decreased Survival in Colorectal Cancer Patients. Cancers (Basel). 2022 Nov 30;14(23):5937.
Zhao L, Zhang X, Zhou Y, Fu K, Lau HC, Chun TW, Cheung AH, Coker OO, Wei H, Wu WK, Wong SH, Sung JJ, To KF, Yu J. Parvimonas micra promotes colorectal tumorigenesis and is associated with prognosis of colorectal cancer patients. Oncogene. 2022 Sep;41(36):4200-4210.
Bergsten E, Mestivier D, Donnadieu F, Pedron T, Barau C, Meda LT, Mettouchi A, Lemichez E, Gorgette O, Chamaillard M, Vaysse A, Volant S, Doukani A, Sansonetti PJ, Sobhani I, Nigro G. Parvimonas micra, an oral pathobiont associated with colorectal cancer, epigenetically reprograms human colonocytes. Gut Microbes. 2023 Dec;15(2):2265138.
Higashi DL, McGuire S, Abdelrahman YM, Zou Z, Qin H, Anderson D, Palmer EA, Kreth J, Merritt J. Development of the First Tractable Genetic System for Parvimonas micra, a Ubiquitous Pathobiont in Human Dysbiotic Disease. Microbiol Spectr. 2022 Apr 27;10(2):e0046522.
Rams TE, Sautter JD, van Winkelhoff AJ. Antibiotic Resistance of Human Periodontal Pathogen Parvimonas micra Over 10 Years. Antibiotics (Basel). 2020 Oct 17;9(10):709.
Suresh R, Jayachandiran S, Balu P, Ranganadin P, Dhamodharan R. Comparative genome analysis of human pathogen Parvimonas micra revealed strain JM503A as potential novel species in the genus Parvimonas and high intra-species functional diversity. Microb Genom. 2025 Sep;11(9):001511.