-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
早高峰车流,空气中的细颗粒物;食物和饮水中可能存在的微量环境化学物;塑料在环境中不断降解形成的微塑料;农业生产中使用的农药,以及某些能够长期残留、蓄积的重金属……
这些东西离我们的生活并不遥远。但大多数时候,我们并不会特别意识到它们。
环境暴露往往不像一次感染那样,会让人突然发烧,也不像食物中毒那样,几个小时后就能明确感受到身体的变化。很多暴露的剂量很低,也没有什么特别感觉。
但如果,把时间从一天拉长到十年、二十年,甚至一生呢?它们会不会在身体里留下长期的生物学痕迹?
这个问题在自身免疫性疾病中尤其值得关注。流行病学数据表明,过去几十年,自身免疫性疾病的患病负担不断增加,但人的基因不可能在如此短的时间里发生同等程度的变化;双胞胎研究也提示,即使遗传背景非常接近,一个人最终是否发生系统性红斑狼疮、类风湿关节炎等疾病,仍然存在明显差异。
于是,研究的视线开始更多地转向基因之外:空气、饮食、化学物、生活方式,以及这些因素在一生中的累积影响。
这正是“暴露组(Exposome)”描述的东西。
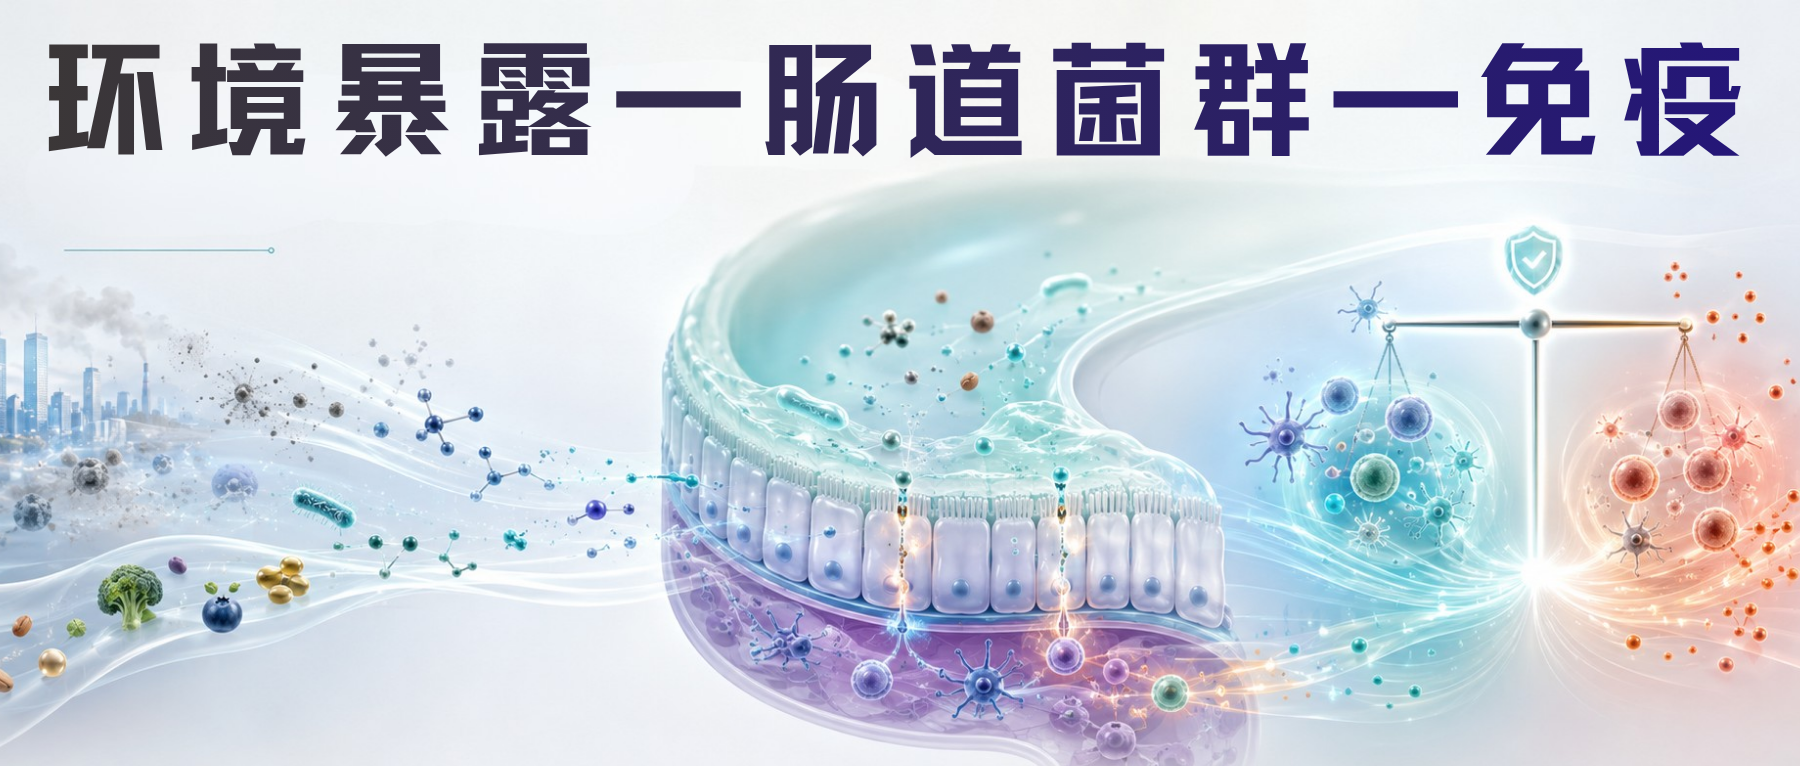
本文我们看看这些外界因素,是如何被身体感知到,又可能怎样经过肠道微生态和免疫系统,一步步影响长期健康。理解这些,有助于寻找稳态发生偏移之前可能被识别和干预的环节。
我们每天都在暴露,只是很少意识到。
2005年,流行病学家 Christopher Wild 提出了一个概念:Exposome,暴露组。
如果说基因组(genome),描述的是一个人与生俱来的遗传信息,那么暴露组描述的,则是一个人从生命早期开始,一生经历的环境暴露总和。
这里的“环境”,比我们平时理解的要宽泛得多。
编辑
环境当然包括空气、水、气候、污染物;也包括饮食、吸烟、运动、职业环境等生活方式因素。
进一步往身体内部看,氧化应激、体内化学环境以及微生物群,也可以被看作暴露在人体内部留下的一部分生物学响应。
过去研究环境因素时,我们可能采用一对一的思路:
但真实生活显然不是这样。
一个生活在城市里的人,可能同时接触交通污染、不同来源的饮食成分、食品加工过程中使用的添加剂、环境中的微塑料和多种低浓度化学物质。而且这种暴露并不是只发生一天。它可能持续很多年。
编辑
因此,暴露组研究开始从单一因素,转向长期、低剂量、多因素共同暴露。
而要理解这些外界因素如何真正进入人体的生理网络,肠道是一个很重要的交汇点。
这里既直接面对大量外来物质,也聚集着微生物、代谢物、上皮屏障和大量免疫细胞。环境与人体的许多复杂互动,就发生在这里。
提到 PM2.5,我们首先想到的往往是肺。
但空气中的颗粒物进入呼吸道后,并不一定都停留在那里。
PM2.5,也会随着吞咽进入肠道
气道表面的黏液会黏住一部分颗粒,再由纤毛不断向咽部清除。这个过程每天都在发生,而其中一部分颗粒最终会随着吞咽进入消化道。
那么,这些颗粒进入肠道以后,会留下什么影响?
研究者已经观察到一些微生态层面的变化。
编辑
一项研究指出,在交通污染暴露较高的地区,人群肠道中的 Faecalibacterium prausnitzii 、Eubacterium rectale 有所减少。
注:这两类菌都是重要的产丁酸菌。丁酸水平的变化可能进一步影响结肠上皮能量代谢、紧密连接稳定性以及 Treg 相关的免疫调节。
研究提示,PM2.5 暴露可促进 ZO-1、Occludin 等紧密连接蛋白的降解,削弱肠上皮屏障完整性,并增加 LPS 等微生物来源成分跨越肠屏障的机会。
与此同时,PM2.5 还增加肠腔内活性氧(ROS)的产生,形成氧化应激。对于 Faecalibacterium prausnitzii、Eubacterium rectale 这类严格厌氧菌来说,氧化环境本身就不利于其生存;空气污染中的硫氧化物、氮氧化物还可能改变局部 pH,为部分耐受性更强的微生物创造不同的生态条件。
相比通过呼吸道间接进入肠道的颗粒物,我们日常生活中还有一些环境暴露,本身就是经口进入消化道的。
微塑料、农药、重金属,就是其中几类典型代表。
微塑料:先受到影响的,可能是黏液屏障
微塑料先改变黏液层和微生物生态位
微塑料进入肠道后,首先接触到的并不是上皮细胞,而是覆盖在其表面的黏液层。
动物研究显示,聚苯乙烯和聚乙烯微塑料暴露可造成肠道黏液层损伤,并抑制 MUC2 的表达。MUC2 是结肠黏液层最主要的黏蛋白之一,一旦其生成减少,原本用于隔开肠腔微生物和上皮细胞的物理距离也会随之缩短。
黏液层并不是简单的一层保护膜,它本身就是肠道微生态空间结构的一部分。像Akkermansia 这样的黏液相关菌,就生活在这一特殊生态位中。
研究表明,微塑料暴露伴随着 Akkermansia 减少、黏液层变薄,以及微生物与上皮直接接触增加。
而纳米塑料的问题还多了一层。
更小的纳米塑料进一步越过屏障,牵动局部免疫
由于颗粒尺寸更小,它们不仅可能穿过黏液层,还可以吸附其他环境污染物和微生物。有研究称之为:特洛伊木马效应。
BPA、重金属甚至附着在颗粒表面的细菌,都可能借助纳米塑料进一步进入肠道深层组织。
研究还发现,微塑料颗粒可在派尔集合淋巴结(Peyer’s patches)中聚集,并影响树突状细胞的抗原呈递功能,进一步增强 Th1 和 Th17 相关免疫反应。
也就是说,微塑料可能同时改变黏液层结构、微生物空间分布以及局部免疫识别环境。
农药:对肠道微生物形成选择压力
农药的作用方式又不太一样。
草甘膦可能改变菌群中的竞争关系
以草甘膦为例,它的主要作用靶点是植物中的莽草酸途径(shikimate pathway)。人体细胞没有这条代谢通路,但部分肠道微生物有。
这意味着,草甘膦进入肠道后,并不是对所有微生物产生同样的影响,而可能根据不同菌种对莽草酸途径的依赖程度,形成一种生态上的选择压力。
研究显示,草甘膦暴露与 Lactobacillus、Bifidobacterium 等减少有关,而部分对这一通路依赖较低或耐受性更强的 Clostridium、Salmonella 则可能获得相对生长优势。
这样的变化随后会反映到代谢层面。研究提示,草甘膦相关的菌群变化可伴随短链脂肪酸,尤其是产丁酸下降。SCFA 供应减少后,对 Foxp3+ Treg 分化和免疫耐受的支持也可能减弱。
注:这一部分需要谨慎。研究人员同时指出,很多实验中要达到明显菌群改变,使用的草甘膦浓度远高于普通人真实膳食暴露水平。
表1 暴露组分对肠道菌群和免疫系统的调节作用
编辑
doi: 10.1016/j.fct.2026.116331
重金属:影响微生物功能基因和生物转化能力
铅、镉、砷等重金属具有明显的生物蓄积特性。长期暴露下,它们的影响并不只停留在宿主细胞,也可能深入到肠道微生物的基因表达和代谢活动。
从菌群组成,到耐药基因组的重塑
研究显示,镉和铅暴露可促进肠道细菌中抗生素耐药基因的传播,也就是影响微生物群落的耐药基因组。这种传播可以通过细菌之间的水平基因转移发生。
这意味着,环境暴露带来的选择压力,可能进一步改变整个肠道微生物群携带的功能基因(包括它们具备怎样的耐受能力、携带哪些功能基因,以及这些基因如何在群落内部传播)。
微生物,也参与决定砷在体内如何被转化
动物研究显示,砷暴露可以损害肠道菌群对砷的生物转化能力,并导致包括单甲基砷酸在内的毒性代谢物积累,进一步加重氧化应激和系统性炎症。
关于重金属和肠道菌群,谷禾在之前的文章中有过更多阐述,详见:
因此,在某些环境化学物的暴露中,肠道菌群既可能是被影响的一方,也可能反过来参与决定这些物质最终形成怎样的代谢产物,以及宿主实际面对怎样的生物学暴露。
这也是为什么,当我们讨论环境因素与健康的关系时,仅仅测量外界暴露浓度往往还不够。进入人体生理系统的,已经不是最初的那个化学物,而是经过微生物和宿主共同代谢之后形成的一整套新的分子环境。
但这些发生在肠道里的变化,并不会一直停留在肠腔内部。
当代谢环境和屏障状态同时发生变化,一些原本被限制在肠腔中的微生物信号,就有机会进一步进入宿主的免疫视野。
食品乳化剂、微塑料和草甘膦等暴露可能与 Zonulin 介导的肠道通透性调节有关。Zonulin 是参与调节细胞间紧密连接的蛋白;相关信号可激活 EGFR(表皮生长因子受体)通路,使紧密连接蛋白与细胞骨架之间的连接发生改变,细胞间隙随之扩大。
原本主要被限制在肠腔中的细菌抗原、LPS(脂多糖)、肽聚糖以及部分未完全消化的食物蛋白(例如,麸质-醇溶蛋白),都可能获得更多机会穿过细胞之间的通路,进入肠黏膜固有层。
其中最典型的一类信号,就是 LPS。
LPS 原本是革兰阴性菌外膜的组成成分。在肠道屏障完整时,它主要被限制在肠腔内;但当屏障通透性增加,LPS 等微生物来源成分就更有机会接触黏膜免疫细胞,甚至进入循环。
更多关于LPS 可以看谷禾之前详细写过的文章:
LPS 一旦被识别,炎症通路就会启动
LPS 是革兰阴性菌外膜的重要组成成分。对于免疫系统来说,它并不是一个普通的细菌碎片,而是一类高度明确的微生物存在信号。
巨噬细胞、树突状细胞等先天免疫细胞表面的 TLR4可以识别 LPS,随后激活下游 NF-κB 信号通路,促进 IL-1β、IL-6、TNF-α 等促炎因子的表达。
这套反应本身并不是坏事。短时间内,它是免疫系统面对细菌入侵时非常重要的防御机制。
需要关注的是刺激的持续时间和频率。
如果微生物来源的信号长期、反复进入免疫系统,TLR4—NF-κB 这套通路就可能持续处于被激活的状态。
这种由肠源性 LPS 持续进入循环所形成的状态称为代谢性内毒素血症。
也就是说,问题不一定来自某一次强烈刺激,而可能来自低强度、长时间、反复出现的免疫输入。
这也是环境暴露研究越来越重视长期累积的原因。
同样是外界暴露,进入免疫系统的信号量未必相同
我们通常衡量环境暴露,会关注空气中有多少 PM2.5、食物中有多少某种化学物,或者一个人接触了多久。
但从人体内部来看,外界暴露量并不等于免疫系统最终实际面对的生物学刺激量。
在两者之间,还隔着肠道微生态、微生物代谢、黏液层和上皮屏障等多个环节。
如果屏障完整,很多微生物成分仍然被限制在肠腔内;如果屏障通透性升高,免疫系统实际接收到的信号就可能不同。
从这个角度看,一个人的内部状态,本身就是环境暴露最终产生怎样生物学效应的一部分。
这提示我们:当外部暴露无法完全避免时,身体内部如何处理这些暴露,同样值得关注。
持续的抗原暴露,会增加免疫“误伤”的机会
如果刺激继续存在,问题还可能进一步深入到免疫耐受。
长期的细菌抗原输入可能参与分子模拟。
有些微生物抗原与人体自身蛋白在结构上存在一定相似性。免疫系统原本针对微生物建立的抗体或 T 细胞反应,在特定情况下可能同时识别人体自身成分。
例如,针对细菌 HSP60 产生的抗体可能与人体 HSP60 发生交叉反应,从而与血管内皮损伤和自身免疫性血管炎等过程相关。
编辑
到这里,除了关注炎症高不高,还可以看免疫系统是否还能准确区分什么需要攻击,什么应该耐受。
而在这套判断机制中,还有一个非常特别的分子节点。
它一边接收来自肠道微生物的代谢信号,一边也能直接感知某些环境污染物。
这个节点,就是 AhR。
芳香烃受体,AhR (Aryl Hydrocarbon Receptor)。
它最早因为能够响应二噁英等环境化学物而受到关注,因此很长时间里,人们把它理解为一个环境污染物感受器。
但现在看来,AhR 的角色远比这复杂。
在肠道中,它本身就是连接微生物代谢、黏膜屏障、免疫调节的重要节点。
同一个受体,可以接收完全不同来源的信号
正常情况下,部分乳杆菌属、双歧杆菌属可以参与色氨酸代谢,产生吲哚-3-醛、吲哚-3-乙酸等吲哚类代谢物。这些微生物来源的小分子可以作为 AhR 的天然配体。
AhR 被激活后进入细胞核,与 ARNT 结合,再作用于特定 DNA 调控区域,影响下游基因表达。
在生理状态下,这类信号有助于促进 IL-22 产生,并参与 Foxp3+ Treg 的维持,从而支持黏膜屏障和免疫耐受。
这也是为什么,有时候就只看菌群组成还不够,决定宿主接收到什么信号的,是这些微生物正在进行怎样的代谢。
污染物也能进入这套信号系统
问题在于,AhR 并不只识别微生物来源的配体。
二噁英、PCB(多氯联苯)、PAH(多环芳烃)等环境污染物,同样可以与 AhR 结合。而且部分外源化学物对 AhR 具有更高的亲和力,并可能造成更加持续的受体激活。
以 TCDD 为例,研究提出,这类外源配体可能干扰 AhR 正常的降解和关闭过程,使信号持续存在。
同样是 AhR,被不同来源、不同强度、不同持续时间的配体激活,产生的免疫结果并不完全一样。
这也是 AhR 研究最值得关注的地方:环境化学物和微生物代谢物,实际上可能在竞争同一个宿主信号入口。
AhR信号方式改变→Treg/Th17 平衡也改变
AhR 信号异常后,一个重要的下游结果,是 Treg / Th17 平衡发生偏移。
Treg 负责维持免疫耐受,限制过度炎症;Th17 则更偏向促炎反应。
编辑
研究指出,污染物造成的持续 AhR 激活可能抑制 Foxp3+ Treg 的形成,同时促进 Th17 相关反应,使 IL-17/IL-22 轴向更明显的促炎方向偏移。
空气颗粒物还可以通过 AhR 激活树突状细胞,增强抗原呈递,并进一步促进自身反应性 T 细胞的激活。
这也提供了一个理解个体差异的角度。面对同一种外界暴露,不同人的肠道微生态、色氨酸代谢能力、屏障状态和免疫调节基础并不会完全一致。
而有些环境影响,甚至可能比一次炎症反应持续得更久。因为它们能够进一步改变基因的使用方式。
AhR连接污染物、肠道菌群与免疫机制
编辑
doi.org/10.3389/fmicb.2026.1737229
我们的 DNA 序列通常不会因为一次环境暴露而改变。
但同一套 DNA,可以有完全不同的表达方式。
这就是表观遗传。
重金属,可能让部分 T 细胞基因更容易打开
DNA 甲基化是调节基因表达的重要方式之一,而维持这一过程的重要酶是 DNMT。
注:DNMT,DNA methyltransferase,DNA 甲基转移酶。通过SAM辅因子将甲基转移至胞嘧啶,调控基因表达与细胞分化,其异常与多种肿瘤的发生发展密切相关。
研究表明,重金属等环境毒物可抑制 DNMT 活性,引起 DNA 低甲基化。
在 CD4+ T 细胞中,CD11a(LFA-1)、CD70、KIR 等基因启动子区域发生低甲基化后,其表达增加,可能使 T 细胞逐渐呈现更强的自身反应性表型。
也就是说,即使最初的环境刺激已经过去,免疫细胞的功能状态仍可能留下一段时间的改变。环境暴露的影响,也就从一次免疫反应,进一步进入了免疫细胞本身的基因调控层面。
编辑
另一种变化发生在 Foxp3 上。
Foxp3 是维持 Treg 功能的重要调控因子。研究提到,当 Foxp3 启动子发生高甲基化后,其表达可能受到抑制,Treg 维持免疫耐受的能力也可能随之减弱。
这样一来,问题就更具体了:
一些原本该受限制的自身反应性 T 细胞可能更容易被激活,而负责维持免疫耐受的 Treg 调节作用又可能减弱。
当这两类变化同时存在时,免疫系统对自身组织的容忍边界就可能变得更不稳定,开始向不利的方向偏移。
不只是 DNA 甲基化,炎症基因本身也可能变得更容易启动
环境暴露还可以作用于染色质结构。
研究提到,PM2.5 和氧化应激能够改变 HDAC(组蛋白去乙酰化酶) 活性,使 IL-6、TNF-α 等炎症相关基因所在的染色质区域更加开放,也就是更容易被转录。
这里其实出现了一个很有意思的交汇。
前面我们讲过,菌群产生的短链脂肪酸,尤其丁酸,本身也具有HDAC抑制作用,并参与 Foxp3+ Treg 的调节。
也就是说,环境污染带来的氧化应激,与肠道微生物产生的代谢信号,可以在同一类表观遗传调节机制上发生交汇。
这也是为什么单纯讨论暴露了多少污染物,有时还不足以解释人与人之间不同的生物学反应。进入人体之后,这些外来信号并不是在一张白纸上发挥作用。它面对的,是一个原本就存在差异的代谢、微生态和免疫背景。
砷还可能通过 microRNA 改变炎症的刹车系统
表观遗传调控还包括 microRNA。
砷和 BPA 暴露可改变 miR-146a、miR-155 等免疫调节 microRNA 的水平。
其中,miR-155 过度表达会抑制 SOCS1。SOCS1 原本是细胞因子信号中的一个重要负调节因子,可以理解为 JAK/STAT 通路上的刹车。当 SOCS1 被抑制后,JAK/STAT 信号可能持续活跃,慢性炎症也更容易被维持。
所以,长期环境暴露值得关注的,它还可能逐渐改变免疫系统的反应阈值和调节方式。
而当这种状态持续足够久,另一个变化开始出现——免疫系统本身,也可能提前进入衰老。
我们通常用年龄来理解衰老。但对免疫系统来说,身份证上的年龄,不能解释全部差异。
同样是50岁,有些人的免疫系统仍然保持较好的调节能力;另一些人却可能已经出现更明显的慢性炎症、免疫耗竭和衰老细胞积累。
长期环境压力就是其中一个值得研究的因素。
研究表明,长期存在的氧化应激、DNA 损伤和慢性炎症,都可能推动免疫细胞更早出现衰老特征。
PM2.5、重金属等环境暴露与免疫细胞端粒缩短有关,并可能推动细胞进入复制性衰老。
注:复制性衰老指正常体细胞因反复分裂导致端粒不断缩短、触发DNA损伤应答,达到分裂极限后发生的不可逆增殖停滞状态。它与端粒酶活性降低密切相关。
衰老细胞会持续释放炎症信号
端粒不断缩短后,一些免疫细胞逐渐失去正常的增殖能力。但这并不意味着它们会安静地退出。
进入衰老状态的细胞可能形成 SASP(Senescence-Associated Secretory Phenotype,衰老相关分泌表型),持续释放 IL-6、IL-1β、MMPs、趋化因子等炎症信号。
这些信号又会改变周围组织环境,甚至推动邻近细胞出现衰老特征。
于是,一个循环开始形成:
慢性炎症和环境压力推动细胞衰老,而衰老细胞又继续制造炎症。
这也是炎症性衰老的重要特征——没有明显感染,身体却长期处于一种低水平、难以完全消退的炎症状态。
前面提到的肠源性 LPS,在这里也有了更长期的意义。研究提出,持续的 LPS 转位和 TLR4 刺激可能使免疫系统长期难以回到静息状态,并与免疫细胞出现耗竭表型有关。
动物研究:老龄菌群可参与推动炎症性衰老
这也引出了另一个问题:
随着年龄增长而发生的肠道菌群变化,只是衰老的结果,还是也可能反过来参与炎症性衰老?
动物实验给出了一些更直接的线索。
一项研究将老龄来源的肠道菌群转移给无菌小鼠,结果显示,这种菌群转移能够促进受体出现系统性炎症性衰老。也就是说,至少在这一动物模型中,老龄微生态本身具有推动炎症性衰老的能力,而不只是随着衰老被动发生变化。
另一项小鼠研究进一步发现,老龄小鼠肠道菌群来源的LPS能够激活TLR4,并增强巨噬细胞的炎症反应。
当然,目前菌群推动免疫衰老的直接证据仍以动物实验和机制研究为主,但这些研究至少提示:
长期环境压力作用于人体时,决定免疫系统最终处于怎样的状态的,可能不仅是外界暴露本身,还包括体内长期存在的炎症和微生态信号背景。
当这种状态继续积累,变化还会进一步进入 T 细胞和 B 细胞层面。
而这就把问题推向了下一步——免疫系统为什么会越来越容易把攻击指向自身组织?
免疫系统衰老之后,出现的并不只是防御能力下降。一些已经带有明显衰老特征的免疫细胞,反而会保留较强的炎症和组织攻击能力;与此同时,另一部分 B 细胞开始更容易产生针对自身成分的抗体。
免疫衰老因此并不是简单地让免疫反应越来越弱,而是让整个免疫系统的工作方式发生偏移。
类风湿关节炎和系统性红斑狼疮中的一些免疫细胞变化,就提供了两个很具体的例子。
T 细胞:衰老之后,组织攻击能力仍可能保留
在类风湿关节炎(RA)研究中,一类具有衰老特征的 CD4+CD28− T细胞受到关注。
这类细胞已经失去 CD28 共刺激分子,并表达 CD57、KLRG1 等衰老相关标志,但仍能够释放穿孔素(perforin)和颗粒酶(granzyme),产生直接的细胞毒性作用。
这类细胞可以在类风湿关节炎患者的关节滑液中积累,并被认为可能直接参与关节软骨损伤。
也就是说,免疫细胞变老之后,攻击能力与正常调控之间逐渐失去平衡。
编辑
B 细胞:针对自身成分的抗体更容易出现
研究关注到一类年龄相关B细胞(ABCs,Age-associated B Cells),在长期抗原刺激和细胞压力下,初始 B 细胞的发育可能受到抑制,而 ABCs 逐渐扩增。
与产生针对病原体的保护性抗体相比,这类细胞更倾向产生针对自身 DNA 和核蛋白的抗体,例如 anti-dsDNA 和 ANA。
在系统性红斑狼疮患者中,ABCs 的比例还与疾病活动程度以及狼疮性肾炎相关。
一个是具有组织损伤能力的 T 细胞积累,一个是更容易产生自身抗体的 B 细胞扩增。
当然,这并不是说某种污染物会沿着一条固定路径最终导致类风湿关节炎或系统性红斑狼疮。自身免疫病本身就是遗传、感染、环境和免疫状态等多种因素共同参与的复杂疾病。
表2 暴露体诱导的自身免疫和免疫衰老的细胞和分子特征
编辑
doi: 10.1016/j.fct.2026.116331
先降低外部压力,再稳住肠道这个界面;如果内部状态已经发生偏移,再找到具体环节进行纠正。
环境接触,既做减法,也可做加法
能减少的明显暴露,当然首先应该减少。比如说吸烟、二手烟、职业性污染物以及持续的高污染环境暴露等。
但环境健康研究正在出现另一个有意思的方向:环境并不只有有害暴露,还存在可能促进健康的有益暴露。
最近的一篇研究提出,有益暴露其中包括绿地、森林环境以及植物释放的挥发性化合物。
编辑
doi.org/10.1186/s40246-025-00882-y
比如森林空气中的α-蒎烯,在细胞实验中可以抑制 LPS 诱导的 MAPK/NF-κB 信号,并降低 IL-6、TNF-α、iNOS、COX-2;一些人体森林浴研究还观察到 NK 细胞数量和活性升高,而且变化可持续超过 7 天。
这种影响也不只体现在免疫细胞上。人体森林浴研究中,富含植物挥发物的森林环境还伴随尿液皮质醇、肾上腺素和去甲肾上腺素下降;短期森林停留后,也观察到血清皮质醇、尿肾上腺素和血压降低。
这为我们提供了一个很好的视角:环境干预未必只有躲开什么,未来也可能包括主动增加一些对免疫和压力调节更友好的环境暴露,比如说多接触户外大自然,空旷的草坪,森林等。
稳住肠道微生态和屏障,让它更有缓冲能力
当一部分暴露无法避免时,更现实的问题就变成:进入肠道以后,这套系统能不能维持稳定。
饮食
高纤维的地中海式饮食,比如更多蔬菜、水果、豆类、全谷物、坚果,配合适量鱼类,与更丰富、更稳定的肠道菌群以及较低的系统炎症相关。
研究表明,较高依从性的地中海饮食与 CRP、IL-6 等炎症指标降低以及更好的 T 细胞功能相关。
从菌群机制上也很好理解:膳食纤维给产短链脂肪酸菌提供底物,丁酸等代谢物又参与维持上皮屏障和 Treg 稳态。
益生菌、益生元
益生元、益生菌及合生元也被研究用于提高微生物多样性、屏障功能和 IgA 相关黏膜免疫。
酸奶、开菲尔、豆豉和泡菜等发酵食品富含益生菌。一些益生菌产生活性神经元化合物或充当载体。一些双歧杆菌和乳酸杆菌菌株分泌γ-氨基丁酸 (GABA),增加黏液分泌、强化紧密连接,并通过 SCFA 抑制 NF-κB 炎症信号。
不过,即使同样增加膳食纤维,有些人的菌群能够有效利用并产生预期代谢物,有些人却未必;不同益生菌菌株的活性、定植能力和代谢功能也差异很大。
植物来源的活性成分
除了直接补充益生菌、益生元,一些植物来源的活性成分也可能改变肠道中的生态选择压力。
比如在 LPS 诱导肠道炎症的小鼠模型中,山苍子精油干预后,肝脏和肠道中的TNF-α、IL-6、IL-1β 水平下降,同时 Lactobacillaceae、Lachnospiraceae 等菌群增加,并伴随结肠隐窝和上皮完整性的改善。
体外研究发现,香芹酚、肉桂醛、柠檬醛、百里香酚等植物挥发性成分,对C. perfringens、E. coli、部分Salmonella等潜在致病菌抑制更明显。
注:真实人体肠道中的有效剂量和长期影响还需要验证。
判断稳态偏移发生在哪里
如果一个人的问题主要是产丁酸功能不足,和 LPS 相关信号偏高或者屏障状态不佳,显然不一样。
因此,干预前不妨看一下菌群结构,微生态恢复力,短链脂肪酸、色氨酸等代谢功能有没有偏移,屏障和 LPS 相关信号是否异常等。
编辑
<来源:谷禾健康肠道菌群检测数据库>
已经发现偏移——做针对性的纠正
文中我们了解到,一些污染物进入体内会引发氧化应激和慢性炎症,那么针对已经出现的这些问题,也有一些干预措施。
多酚类
白藜芦醇在衰老或慢性炎症小鼠模型中,被观察到可以提高 T 细胞增殖和 NK 细胞活性,同时降低 IL-6、TNF-α。
姜黄素则在细胞和动物研究中表现出抑制 NLRP3 炎症小体、促进自噬以及上调 SIRT1 等作用。姜黄素的作用还有一部分经过肠道菌群。详见谷禾之前的文章:姜黄素与肠道微生物群之间的互作:姜黄素对健康影响的益处
其他例如绿茶儿茶素、可可等富含黄酮的干预,在部分老年人研究中与 NK 细胞活性、疫苗抗体反应以及炎症指标改善有关。
Omega-3
EPA、DHA一方面可以影响 PPAR 和 NF-κB 等炎症通路,另一方面还是消退素、保护素等促炎症消退介质的前体。
也就是说,不仅是减少炎症产生,还涉及帮助已经发生的炎症正常结束。
维生素D
维生素D参与巨噬细胞、树突状细胞以及T细胞分化。在一项针对维生素D缺乏老年人的随机临床试验中,维生素D联合N-乙酰半胱氨酸干预 8 周后,外周血单个核细胞中的 p16、IL-6、TNF-α 等衰老和炎症相关指标下降。
当明确存在营养缺乏时,纠正缺乏本身可能减少额外的免疫压力。
睡眠和运动
长期睡眠不足会提高 IL-6、TNF-α,削弱 T 细胞增殖,并影响抗体应答。
规律运动与更低的CRP、IL-6、TNF-α以及更年轻的 T 细胞组成相关;一些老年人阻力训练研究还观察到,SASP 相关炎症介质和 T 细胞衰老指标下降。
现实生活中,很多暴露剂量并不高,也不会让身体立刻出现明显反应。我们也很难做到生活在一个完全没有环境暴露的世界里。
更值得关注的是,这些长期、低剂量的外部信号进入身体以后,会经过怎样的微生物代谢、屏障和免疫调节,最终形成不同的生物学结果。
这也是我们为什么越来越关注肠道微生态。环境告诉我们,身体正在面对什么;肠道微生态则提供了一个观察身体内部如何响应这些信号的窗口。
未来研究也正从单一污染物模型,走向更接近真实生活的低剂量混合暴露;从横截面的菌群比较,走向菌群长期追踪;再把微生物组、代谢组、免疫指标和暴露数据结合起来,理解为什么面对相似的外部环境,不同人的生物学反应仍然可能不同。
干预没有统一答案,因为不同产品作用在不同节点;而肠道菌群检测可以帮助找到这些重要节点,并观察这个节点有没有按照预期发生变化。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献:
Daşdemir FO, Sari MF, Aktaş B, Kocazeybek B. The Exposome-Autoimmunity Axis: Environmental Xenobiotics, Gut Dysbiosis, and Potential Pathways to Immunosenescence. Food Chem Toxicol. 2026 Aug 10:116331.
Fouladi F, Bailey MJ, Patterson WB, Sioda M, Blakley IC, Fodor AA, Jones RB, Chen Z, Kim JS, Lurmann F, Martino C, Knight R, Gilliland FD, Alderete TL. Air pollution exposure is associated with the gut microbiome as revealed by shotgun metagenomic sequencing. Environ Int. 2020 May;138:105604.
Kim, J.J.H., Yang, T.B., Zhang, X. et al. Harnessing phytochemicals for engineering health solutions. Hum Genomics 20, 36 (2026).
Li, Z., Li, Y., Yurong, T. et al. Microplastics, the gut microbiome and ageing: mechanisms and intervention strategies. Environ Geochem Health 48, 466 (2026).
Merra, G.; Gualtieri, P.; La Placa, G.; Frank, G.; Della Morte, D.; De Lorenzo, A.; Di Renzo, L. The Relationship between Exposome and Microbiome. Microorganisms 2024, 12, 1386.