-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
编辑
艰难梭菌(Clostridioides difficile)在成年人身上会引起严重的肠道感染,甚至致命性腹泻。但奇怪的是,它经常出现在婴儿的肠道里,孩子却看不出任何症状。
近日发表在《Science》的研究用新生小鼠做模型,发现艰难梭菌定植后,肠道上皮(覆盖肠道内壁的那层细胞)出现了明显的炎症反应和组织修复反应:与”损伤修复”相关的肠道干细胞群体明显增多,而干细胞的分化方向也被”带偏”了——更多地变成分泌型细胞(如产生黏液的细胞),而不是正常比例的吸收型细胞。
编辑
更关键的一点是:即使这些细菌只是短暂停留、后来被清除了,影响却留了下来。这些小鼠长到成年,肠道仍带着早期暴露的痕迹。
那么是什么造成的伤害?研究证明”元凶”是细菌产生的毒素:用不产毒的菌株去定植,幼鼠肠道安然无恙;而给母鼠接种一种针对艰难梭菌的mRNA-脂质纳米颗粒疫苗(技术原理与新冠mRNA疫苗同源),母体产生的抗体也能保护幼崽。
研究还把结论延伸到了人类:人类婴儿的肠道上皮细胞对这些毒素同样敏感;而从已定植婴儿身上取得的肠道活检样本,也显示出干细胞行为的异常改变。
这项研究的意义在于改写了一个临床惯例。目前儿科通常不对无症状婴儿的艰难梭菌做检测或治疗,因为”没症状就没问题”。但”没有腹泻”和”没有影响”是两回事——肠道上皮的重塑可能是无声的。
它也契合近年来“生命早期窗口期”的研究思路:生命最初几个月的微生物暴露,可能通过影响免疫训练和肠道屏障构建,在多年后才显现后果。
不过小编认为虽然研究的实验和设计非常创新和有范式意义,但是该谨慎还是谨慎,小鼠肠道发育与人类节奏差异比较大,人类那部分证据目前只是“关联性”的活检观察,尚不能证明婴儿期定植会导致具体的成年疾病(如炎症性肠病或过敏),长期随访的人群队列验证可能还是很有必要。
最有想象力的一环是母体疫苗策略。通过给孕产妇接种,让抗体经胎盘和母乳传递给婴儿——这条路径已在B族链球菌、RSV等病原体上被验证。如果艰难梭菌真被确认为早期发育的风险因素,这或许是最可行的干预方式。当然,从小鼠模型到临床应用,中间还有很长的路。
接下来一起共同学习和探讨下该研究。
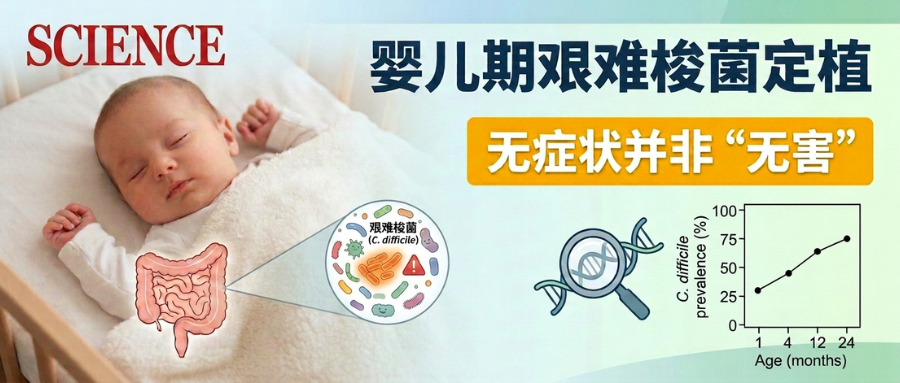
既往研究显示,出生后两年内,40%~70%的婴儿存在艰难梭菌无症状定植。
一支来自美国费城的婴儿队列中,对健康婴儿粪便进行测序,得到几个关键流行病学事实:
1. 艰难梭菌定植率极高:
出生后第一个月内即有28.2% 的婴儿粪便检出艰难梭菌;到 2 岁时累计接近 75%。这一数字高于既往多数文献报告的 40%–70%。
编辑
doi: 10.1126/science.ady2886.
健康婴儿出生后前 24 个月粪便样本中艰难梭菌的检出率(A)与相对丰度(B)。样本量:1 月龄 n = 106,4 月龄 n = 139,12 月龄 n = 133,24 月龄 n = 87。相对丰度(B)以占总读数(reads)的百分比表示。上面 A、B 两图说明艰难梭菌在健康婴儿肠道中检出率高(通常 1–4 月龄达峰、随后随菌群成熟下降)。
从数字看,定植率随月龄快速攀升:出生一个月不到三成,两岁时接近四分之三。这条上升曲线本身就提示,定植更像是婴儿期微生物组装配过程中的一个常规事件,而非罕见的意外暴露。
2. 早期定植率与工业化程度相关:
以往关于婴儿艰难梭菌携带率的研究有一个明显偏差:采样人群绝大多数来自工业化社会。研究者因此做了一次跨地域的比较分析,按照联合国统计司的分类标准,把人群分为工业化、转型中、非工业化三类社会,比较其中婴儿的艰难梭菌携带情况。
编辑
采样国家分布图。颜色代表社会类型划分:工业化(红)、转型中(蓝)、非工业化(绿)、未采样(白)。饼图显示各类别的样本数量。
结果呈现出清晰的梯度:艰难梭菌在工业化社会的婴儿中,携带率和相对丰度都显著高于非工业化社会,而转型中社会处于两者之间的中间水平。
研究者对这一发现的解读相当克制,也相当有分量:这意味着本研究观察到的那些早期反应——上皮炎症、损伤修复型干细胞的富集、分化偏移——可能并不代表所有人群中”正常”的肠道发育过程,而只是暴露水平较高的人群中的特定状态。
由此他们提出一个假说:艰难梭菌的早期定植,或许是工业化塑造上皮-免疫发育轨迹、进而影响长期健康走向的一种新机制。
作者也坦率承认了数据的局限:他们的数据集本身存在测序偏差,工业化地区的样本占比过高。
为什么工业化会提高携带率?
文中没展开,但几条路径是可以推想的。剖宫产率高,婴儿错过了产道菌群的传递,肠道早期生态出现空位;配方奶喂养比例高,双歧杆菌等厌氧菌群建立得较慢,而这些菌通常能通过竞争和产酸抑制艰难梭菌;抗生素使用普遍,包括母亲产前预防性用药;医院分娩环境中艰难梭菌孢子的暴露机会更多;家庭环境更清洁,早期微生物暴露的多样性反而更低。这些因素在方向上是一致的——艰难梭菌是个机会主义者,它擅长填补生态真空。
它与”卫生假说”的关系值得注意,但也要小心。工业化国家过敏、自身免疫、炎症性肠病的高发,长期被归因于”微生物暴露不足”。这项研究提供了一个视角上的补充:问题也许不只是”接触的好菌太少“,还包括“接触了错误的菌”。文章提到的 ILC2、簇细胞减少,恰好落在过敏相关的 2 型免疫通路上——这个巧合让假说变得诱人。
3. 低丰度,高持留
值得注意的是 0.43% 这个丰度数字。它说明艰难梭菌在婴儿肠道里始终是“少数派”,从未占据主导。这留下了一个尚未区分的可能性:婴儿之所以无恙,究竟是因为上皮细胞对毒素有抵抗力,还是因为菌群把这种菌的数量压得足够低、毒素总量不足以致病?丰度数据本身回答不了这个问题——需要后续的小鼠实验来拆解。
但是这个属于典型的低丰度定植,长期以来,医学界因此把婴儿期的这种”定植”(细菌定居下来但不发病)当作无关紧要的现象,但是真的 “无危害”吗?
婴儿携带的是有毒素的致病菌
Science研究继续验证发现婴儿携带的是“真致病菌”:对 1 岁以内婴儿分离株的全基因组分析显示,这些菌株携带并表达毒素基因,且在系统发育上与从 2–18 岁儿童及 18 岁以上活动性感染患者体内分离的菌株聚在同一簇。换言之,婴儿肠道里的艰难梭菌并非“无害的特殊婴儿型”,而与真正致病的菌株没有本质界限。
婴儿、儿童与成人来源艰难梭菌菌株的基因组多样性
编辑
doi: 10.1126/science.ady2886.
这张图要回答什么问题?
正文里有一个绕不开的质疑:婴儿携带艰难梭菌却不发病,是不是因为他们运气好,碰上的都是“温和无毒”的菌株?如果答案是肯定的,整篇论文的立论就不成立了——那就只是细菌的差异,跟宿主没关系。
作者把 725 株细菌的基因组放在一起排系谱,看婴儿株会不会自成一族。
如果婴儿菌株真的特殊,图上应该出现明显的分层——婴儿株聚在某几个分支里,成人致病株聚在另外的分支里,泾渭分明。
实际结果是相反的:婴儿株散落在整棵树中,与来自活动性感染患者的儿童株、成人株交错分布,尤其集中在 Clade 1 这个占了 387 株(超过半数)的大家族里。加上 87.2% 的整体产毒比例,结论很直白——婴儿肠道里的艰难梭菌,也是能让成年人住进医院的那种艰难梭菌。
菌群研究长期偏向”丰度决定影响力”的直觉,但艰难梭菌的作用机制是分泌毒素——毒素是可以扩散、可以放大的。少量有毒菌照样能对邻近的上皮细胞造成持续的局部刺激。
以前两个旧假说的动摇留下了一个真正的空白。既然不是”受体没长好”,也不是”母乳里的抗体挡住了”,那婴儿为什么不腹泻?
这项研究给出的答案思路很有意思:也许婴儿并不是”没受影响”,而是受到的影响以另一种形式表现出来——不是急性腹泻,而是肠道上皮和干细胞层面的静默重塑。
为系统阐明生命早期艰难梭菌暴露对宿主的影响,研究建立了可重现人类婴儿无症状定植特征的新生小鼠模型(下图)。无需对母鼠或幼鼠进行抗生素预处理,艰难梭菌即可在新生小鼠体内定植,菌载量与既往成年小鼠感染模型相当。即使经口接种相当于成年小鼠致死剂量100倍的艰难梭菌VPI 10463菌株,新生小鼠仍未出现疾病或死亡(下图)。
编辑
doi: 10.1126/science.ady2886.
新生期内菌载量与毒素滴度保持稳定,断奶后降至检测限以下(下图)。此外,新生期的艰难梭菌定植并未显著影响早期菌群的演替进程或组成。
编辑
doi: 10.1126/science.ady2886.
艰难梭菌分泌两种外毒素——毒素 A(TcdA)与毒素 B(TcdB),二者是成年个体病理损伤的驱动因素。尽管新生小鼠在定植期间对疾病症状表现出强大抵抗力,但全身性给予重组毒素 B(rTcdB)会在 24 小时内导致 100% 死亡,提示这种保护是由局部机制而非全身机制赋予的。
编辑
doi: 10.1126/science.ady2886.
Tips
这个模型的关键设计优势
成年小鼠要被艰难梭菌感染,必须先用抗生素把原有菌群”清场”——否则健康菌群会把入侵者挡在门外。这带来一个长期困扰该领域的麻烦:你无法区分某个现象是感染本身造成的,还是抗生素破坏菌群造成的。
新生小鼠不需要这道手续。它们的菌群尚未成熟,本身就”门户敞开”。作者因此获得了一个干净的对照体系:菌群未被人为破坏,观察到的一切都可归因于细菌本身。这正是他们质疑此前 γδ T 细胞结论的立足点——那个模型用了广谱抗生素,而抗生素本身就会重塑免疫环境。
剂量对比揭示的保护强度
成年鼠需先破坏菌群、再用 1000 个孢子即可致死;新生鼠接受 100 倍剂量却毫发无损。这不是”轻微耐受”,而是量级上的差异——提示存在某种主动的保护机制,而非仅仅是暴露不足。
一个非常好的排除实验
如果新生鼠只是”毒素打不动”(比如受体不表达、细胞不敏感),那给它们注射纯化毒素也应该没事。结果恰恰相反:全身注射 rTcdB,24 小时内全部死亡。
这个结果的信息量很大。它说明新生鼠的细胞对毒素完全敏感、甚至更脆弱。保护不是”抗毒素”,而是“防毒素抵达”——某种发生在肠腔与上皮界面的局部限制,让毒素无法穿透屏障进入体循环。研究焦点由此被锁定在肠道局部。
近期研究表明,产生白介素-17(IL-17)的γδ T细胞是新生个体免于艰难梭菌相关死亡的关键介导者。但该模型采用广谱抗生素促进定植,因此γδ T细胞在无抗生素条件下是否具有同样的保护作用尚不明确。
研究发现,缺乏B细胞和T细胞(包括γδ T细胞)的RAG-1基因敲除新生鼠定植后仍受到保护,提示本模型中存在其他新生期保护机制。
编辑
doi: 10.1126/science.ady2886.
新生鼠艰难梭菌定植不引发中性粒细胞应答
在成年个体中,血液中性粒细胞计数及其向大肠的浸润是疾病严重程度的主要相关指标。因此作者推测,新生鼠在定植后中性粒细胞募集可能是受抑的。结果显示,新生鼠对艰难梭菌既无血液中性粒细胞扩增,也无向大肠的浸润,与成年鼠形成鲜明对比(下图)。
编辑
doi: 10.1126/science.ady2886.
而药物性减少感染期成年小鼠肠道中性粒细胞募集可显著降低疾病严重程度。综合来看,这些数据提示中性粒细胞扩增与募集的缺失参与了新生个体免于症状性疾病的保护,但其潜在机制很可能是多方面的。
免疫不成熟通过限制中性粒细胞炎症发挥保护
RAG-1 敲除鼠完全没有 T 细胞和 B 细胞,却照样活得好好的。这直接否定了”适应性免疫(含 γδ T 细胞)是必要条件”的说法——至少在无抗生素模型里如此。作者措辞很谨慎(”还有其他机制参与”),没有全盘否定既往工作,但实质上是把解释权收了回来。
中性粒细胞这条线则更接近答案。成人重症艰难梭菌感染的一个残酷真相是:杀死患者的很大程度上是自身的炎症反应——中性粒细胞大量涌入肠壁,在清除细菌的同时把组织一起破坏了。药理学抑制中性粒细胞募集反而能减轻成年小鼠病情,正是这一逻辑的直接证据。
新生鼠的免疫系统尚未具备发动这种猛烈募集的能力。于是出现了一个耐人寻味的转折:新生个体的”免疫不成熟”在这里不是缺陷,而是保护。没有过度反应,就没有自伤性损伤。
尽管未见明显的组织病理损伤,但是发现定植艰难梭菌的新生小鼠粪便中脂质运载蛋白-2 水平升高,提示炎症反应已被激活(图 F)。此外,从感染新生鼠中分离的肠道上皮细胞(IEC)表现出活力下降及剪切型 caspase-3 表达增加,说明存在炎症与病理损伤之间的脱耦联(图 G )。
编辑
doi: 10.1126/science.ady2886.
编辑
doi: 10.1126/science.ady2886.
原文描述的很清楚,炎症在发生(脂质运载蛋白-2 升高、干扰素与 NF-κB 通路激活);细胞在死亡(活力下降、caspase-3 剪切);但组织完好无损(无病理评分升高、无中性粒细胞浸润、幼鼠活蹦乱跳)。
在成年个体里这三者是绑在一起的——炎症导致细胞死亡,细胞死亡导致屏障崩塌,屏障崩塌导致重症。新生个体把这条链在最后一环切断了。
断链的机制在哪:增殖
答案藏在 STAT3 与 Ki67 里。IL-6/JAK/STAT3 通路在肠道中是经典的再生轴——它既是炎症信号,也是驱动干细胞增殖修复的信号。Il22 上调同样指向这一方向(IL-22 是促上皮修复的关键细胞因子)。再加上 G2M 检查点、E2F 靶基因(细胞周期驱动因子)、MTORC1(合成代谢与生长),以及 Ki67 阳性细胞集中在腺体基部(干细胞与祖细胞所在位置)。
进一步推测新生肠道并非避免了细胞死亡,而是用更快的补充速度追上了损失速度。可以理解为一场竞速:毒素在顶端杀死细胞,干细胞在基部加速生产新细胞。只要生产不落后于损耗,屏障就始终连续,毒素就进不了体循环。这与上一节”全身注射毒素 24 小时内 100% 死亡”证据吻合——细胞对毒素毫无抵抗力,保护全靠屏障维持。
72 个基因”这个数字值得琢磨:72 个 DEG,对于一场能杀死成年动物的感染而言,是相当克制的转录响应。而且 67:5 的上调比压倒性偏向”启动防御”,而非”关闭功能”。
上调基因分两组,各有含义。Reg3g、Ltf(乳铁蛋白)、Slpi、Lcn2 属于抗菌肽与营养限制类——上皮自己动手压制细菌,靠夺取铁等资源而非召唤免疫细胞。而 Cxcl5 是中性粒细胞趋化因子,Ly6g 更是中性粒细胞的标志分子。这里出现一个耐人寻味的矛盾:招募信号发出去了,但中性粒细胞没来(上一节已证实)。这提示阻断点不在上皮的”呼叫”环节,而在下游的响应端——新生个体的骨髓储备不足、或中性粒细胞本身迁移能力尚未成熟。上皮在号召,只是没细胞应答。而这恰恰救了幼鼠一命。
下调的细胞骨架基因
Arhgap20、Cyria 都参与 Rho GTPase 与肌动蛋白动态调控。这不是巧合——TcdA/TcdB 的分子作用机制正是糖基化失活 Rho 家族 GTPase,导致肌动蛋白骨架解体、细胞连接丧失。骨架相关基因的转录改变,是毒素在新生上皮内确实发挥了作用的分子指纹。毒素起效了,只是后果被增殖代偿掉了。
研究团队将新生上皮特异性的转录应答与既往发表的成年小鼠艰难梭菌感染期全结肠基因特征进行了比较分析。
编辑
doi: 10.1126/science.ady2886.
结果发现,新生期 DEG 与成年急性感染时间点(AD3–AD5)的 DEG 高度交叠,而在恢复期(AD8、AD10)相关性下降。此外,GSEA 显示新生鼠呈现出与感染成年小鼠相似的通路应答。
这个结果的含义相当反直觉:新生上皮的分子状态,等同于重症成年个体的急性期状态。它们并没有”温和地”应对细菌——从转录组看,它们身处一场急性感染的正中央。区别只在结局:成年个体从这个状态走向组织破坏与死亡,新生个体停在这里,然后靠增殖把损伤填平。
于是全篇的论点收束为一句:决定生死的不是有无炎症,而是上皮能否跟上修复的节奏。
上皮细胞在”备战”,也在”抢修”
基因集富集分析(GSEA)显示,被定植幼鼠的肠道上皮出现了多条炎症通路的激活痕迹:干扰素-γ 和干扰素-α 信号特征、TNF-α 经 NF-κB 的信号通路,以及IL-6/JAK/STAT3 通路的活化。
其中 STAT3 这条线值得单独说。研究者检测到磷酸化 STAT3 水平升高,同时 Il22 表达增加——这两个信号组合起来,是上皮再生反应正在进行的经典标志。与此呼应,GSEA 还富集到了损伤应答、细胞周期和增殖相关的通路:G2M 检查点、E2F 靶基因、MTORC1 信号。最后用 Ki67 染色直接验证了这一点:被定植幼鼠的肠腺基底部(crypt base)增殖活性明显增强。
所以画面是这样的:上皮细胞一边释放炎症和抗菌信号,一边加速分裂修补自己。表面风平浪静,底下工地开工。
新生鼠无症状定植掩盖急性感染样分子反应
研究者随后把幼鼠上皮的转录反应,与已发表的成年小鼠艰难梭菌感染时的全结肠基因特征做了比对。结果颇具冲击力:幼鼠的差异表达基因与成年鼠急性感染期(第 3–5 天)的基因高度重叠;而随着成年鼠进入恢复期(第 8–10 天),这种相关性就下降了。通路层面的分析也得出同样结论——幼鼠的反应模式,近似于一只正在生病的成年鼠。
这是个很有说服力的论证。它说明幼鼠的”无症状”只存在于宏观层面:在分子层面,它们的肠道正在经历一场急性感染。
关键发现:干细胞被推向了”损伤模式”
既然增殖和再生信号如此突出,研究者转向直接检验肠道干细胞(ISC)的功能。他们在出生后第 14 天分离幼鼠的肠道干细胞,培养成结肠类器官(organoid)——这是评估干细胞功能和再生潜力的标准手段。
来自被定植幼鼠的干细胞表现出:
•更高的类器官形成效率(OFE)
•更高的偏心率(即形状更不规则,圆度下降)
•更多的芽状突起(budding)
这些形态特征通常意味着再生潜力和分化活动都被增强了。
更精确的机制来自两类干细胞的区分。
LGR5⁺ 干细胞负责肠道上皮的日常更新,是”常规维护工”;SCA-1⁺ 干细胞(表达 Ly6a)则专门负责损伤后的修复,是”应急抢修队”。
数据非常清晰:Ly6a 是被定植幼鼠上皮中上调最显著的基因之一,而 Lgr5 表达没有变化。流式细胞术进一步确认了 SCA-1⁺ 干细胞的富集。
换句话说,幼鼠的肠道并没有停止日常运转,而是额外启动了应急修复系统——身体判定这里发生了损伤。
新生期定植艰难梭菌重塑干细胞并留下持久记忆
除干细胞身份外,分化去向也被重塑。分泌型标志普遍上调:Dclk1(簇/tuft cell)、Muc2(杯状细胞)、Chga(肠内分泌细胞);而吸收型结肠细胞标志Apob无明显变化。荧光显微镜亦证实MUC2⁺杯状细胞增多。
更关键的是,这些改变持久存在:新生期定植、断奶后细菌已清除的小鼠,至8周龄成年仍较对照呈现杯状细胞(MUC2⁺)扩增,且DCLK1⁺簇细胞减少。
编辑
doi: 10.1126/science.ady2886.
编辑
doi: 10.1126/science.ady2886.
体外结果进一步支持细胞“记忆”:离体传代10次后,这些干细胞仍保留增强的增殖潜能与特殊类器官形态;Muc2和Chga表达仍有升高趋势,Ly6a持续高表达,而Lgr5下调。由于此时细胞已脱离细菌、毒素与免疫信号,“记得”的改变更可能是细胞内在(cell-intrinsic)的表观遗传重塑,而非依赖持续外界刺激。
编辑
doi: 10.1126/science.ady2886.
最后,体内谱系追踪表明杯状细胞增多由经典LGR5⁺干细胞分化路径驱动。综上,作者认为艰难梭菌在幼鼠上皮诱导两条并行反应:损伤修复型干细胞的出现以促进再生,以及LGR5⁺干细胞分化程序的重编程。
留下的印记有什么后果?
杯状细胞可以充当某些肠道病毒的复制场所——包括小鼠星状病毒。研究者据此做了一个功能性验证:新生期被定植过的成年小鼠,在感染病毒 12 天后,粪便中的病毒载量高于对照组。
也就是说,早年的细菌暴露改变了肠道的细胞构成,而这种构成上的偏移,在成年后转化为对另一种病原体的易感性升高。
作者也坦诚地报告了阴性结果:新生期的预定植对成年后的艰难梭菌感染既没有保护作用,也没有加重病情——体重下降和上皮损伤都没有差异。
此外,成年期感染会导致类器官形成能力下降,无论此前是否被定植过。这与已有研究一致:成年期的艰难梭菌感染会损伤肠道干细胞、削弱上皮恢复能力。
关于那个”传代 10 次”的实验,值得强调它在逻辑上解决了什么问题。观察到成年小鼠仍有细胞组成异常,其实有多种解释:可能是持续的低水平炎症在维持,可能是菌群结构被永久改变了,也可能是免疫记忆在起作用。而离体类器官实验把所有这些外部因素都剥离了——细胞在培养皿里传了十代,环境完全人工,改变依然存在。剩下的解释就只有一个:干细胞自身可能被改写了。
不过这里有个作者也未回避的软点:Muc2 和 Chga 在传代后只是”呈现升高趋势”,也就是没有达到统计学显著。这说明细胞内在记忆的证据在形态和生长层面很强,在具体分化基因层面则相对弱一些。真正的机制层面还缺一块拼图——如果是表观遗传,那么是 DNA 甲基化、组蛋白修饰,还是染色质可及性的变化?这需要 ATAC-seq 或甲基化测序来回答,是后续研究的明显方向。
编辑
doi: 10.1126/science.ady2886.
免疫细胞也留下了长期痕迹
由于肠道上皮与免疫系统存在密切的双向对话,研究者进一步评估免疫层面的变化。他们对新生期定植后小鼠在4周龄与8周龄的结肠固有层免疫细胞做免疫分型,发现两类先天淋巴细胞显著减少:GATA3⁺的2型先天淋巴细胞(ILC2)和RORγt⁺的3型先天淋巴细胞(ILC3)。
值得注意的是其“选择性”:辅助性T细胞亚群无变化,髓系细胞群亦不变。研究者还排除了一个直观的替代解释——这些长期免疫改变并非由持续的菌群失调所致;作者虽然谨慎指出,早期短暂的菌群组成或功能波动仍可能部分参与。
关键的机制实验:是毒素,不是定植本身
这是全文逻辑上最严密的一部分。研究者要回答一个二选一的问题:上皮的这些改变,究竟是毒素造成的,还是仅仅”有细菌住进来”就够了?
他们用了四组互相印证的实验:
•第一:体外直接给新生小鼠的肠道上皮细胞加入重组毒素 B——细胞存活率显著下降。毒素本身足以造成损伤。
•第二:用从健康人类婴儿体内分离出的产毒株和不产毒株分别定植幼鼠。两株菌的定植量相当,产毒株那组粪便中也检出了相应水平的毒素,且幼鼠都没有发病。但差异出现在细胞层面:产毒株组的上皮细胞存活率下降、Lcn2、Reg3g、Slpi 等基因上调;不产毒株组则完全没有这些变化。产毒株组的干细胞也表现出类器官形成效率、偏心率、芽状突起的增加。
编辑
doi: 10.1126/science.ady2886.
•第三,也是最干净的一组:用野生型 R20291 菌株与其同源的 ΔtcdA ΔtcdB 双敲除突变体做对比。这两株菌在遗传背景上几乎完全一致,唯一的区别就是能不能产毒素。结果只有野生型引发了那些表型。
•第四,长期效应也同样依赖毒素:离体传代 10 次后仍保留的类器官表型,成年后持续存在的杯状细胞和肠内分泌细胞增生,以及先天淋巴细胞的减少——全部只出现在产毒菌株定植的小鼠身上。
结论因此非常明确:新生期上皮的这些反应,源于毒素对肠道干细胞的作用,而不是细菌定植本身。
母体接种疫苗,能保护下一代
既然母体可通过脐带血和母乳将抗艰难梭菌抗体传给后代,研究者便用此思路设计了多价 mRNA-脂质纳米颗粒疫苗来实现母体免疫。
编辑
doi: 10.1126/science.ady2886.
接种母鼠后,幼鼠胃内容物与粪便中可检测到抗 TcdA、抗 TcdB 的 IgG 与 IgA;但抗体并未降低肠道菌载量。相应地,幼鼠粪便毒素滴度下降、上皮细胞存活率提高,Ki67 显示的过度增殖被减弱。更关键的是,幼鼠干细胞长出的类器官与未被定植对照几乎一致,过度增殖与异常分化均被逆转;且保护可持续,母鼠后续新生窝崽同样受益。
值得一提的是,疫苗并未清除细菌,只是中和毒素——而这已经足以保护发育中的肠道。该结果也与前述机制结论相互印证:若毒素是元凶,中和毒素就足够了。
在人类身上的验证
最后研究者转向人类样本。首先,被定植的人类婴儿粪便中脂钙蛋白水平升高,与小鼠模型一致。
随后他们获取了5 名婴儿患者的结肠活检样本,并配对粪便样本以确定定植状态。结果:
其中一名被定植婴儿的活检 RNA 显示 Ly6a、Muc2、Chga 升高,而Lgr5、Dclk1、Apob 无变化——与小鼠模型的模式高度吻合;
人类婴儿的肠道上皮细胞在毒素处理下出现剂量依赖性的细胞死亡和屏障功能下降;
来自两名被定植婴儿的类器官,在多次传代中都表现出增殖和分化增强,Ly6a、Muc2、Chga表达升高。
编辑
doi: 10.1126/science.ady2886.
作者由此提出:艰难梭菌毒素对人类婴儿肠道干细胞有直接作用,这挑战了”婴儿肠道上皮天生对艰难梭菌毒素有抵抗力”这一长期假设。但他们也明确写道:样本量有限,需要未来研究进一步验证。
特别注意
先说这项研究最强的一环。ΔtcdA ΔtcdB 同源突变体那个实验是分子微生物学中的“金标准”设计——两株菌除了毒素基因外基因组完全相同,因此任何表型差异都只能归因于毒素。加上体外重组毒素实验(充分性)和不产毒临床株实验(必要性),这些结果为毒素介导肠道损伤的因果作用提供了较为有力的实验支持。
母体疫苗的部分在概念上很优雅,尤其是”不清菌、只中和毒素”这一点。它暗示了一种温和的干预哲学:不必扰动婴儿正在建立的菌群生态,只需要拦掉那个有害的分子。这比用抗生素清除细菌要合理得多——后者可能造成比艰难梭菌本身更大的发育扰动。
其最容易被过度解读的地方。5 例活检,其中用于基因表达比较的实际上是 1 例定植 vs 1 例未定植;类器官来自 2 例。这个规模无法做任何统计学推断——它是病例观察,不是队列证据。个体间的肠道基因表达差异本身就极大,受年龄、饮食、用药、活检部位、就诊原因等无数因素影响。而且这些婴儿是”患者”,本来就因为某种疾病在接受结肠活检,这本身就是一层混杂因素。
所以这部分数据的正确定位是:它证明了”人类婴儿的细胞对毒素敏感”(这部分有体外剂量反应曲线支持,比较可靠),并提供了”人体内也可能发生类似改变”的初步线索(这部分只是提示)。 它不能证明人类婴儿被定植后真的会发生持久的干细胞重编程。作者在结论中保留了这一点,比较谨慎。
关于 ILC2 和 ILC3 的减少,这条线索的潜在意义可能比文中着墨的分量更重。ILC3 参与维持肠道屏障和抗菌肽分泌,与炎症性肠病风险相关;ILC2则参与 2 型免疫,与过敏和哮喘有关。有趣的是,ILC2 的减少与前面提到的簇细胞减少在生物学上是一致的——簇细胞和 ILC2 之间存在一个正反馈回路(簇细胞分泌 IL-25 激活 ILC2)。
两个环节同步下降,说明整条 2 型免疫轴在发育中被压低了。这为”早期定植是否影响成年后过敏性疾病”提供了一个具体的机制假设,但要强调这仍然只是假设——文中并未测试这些小鼠的过敏或炎症表型。
小编想先指出文章讨论里最值得称赞的一句话,也是最容易被忽略的一句:”或者反而以某种方式对宿主发育有益”(or alternatively shape host development in beneficial ways)。
这句话把研究立意和读者从”揭露威胁”拉回到了“提出问题”。仔细想,它有充分的理由存在。杯状细胞增多意味着黏液层加厚、屏障更强;损伤修复型干细胞的富集意味着组织具备了更强的应变能力;轻度的炎症暴露在免疫训练中往往是必需的,而不是有害的。
生命早期的免疫系统需要”练兵”,一个不产生疾病、但确实引发反应的刺激,理论上完全可能是一次有益的训练。研究者观察到的所有现象,在生物学上都可以被读成“损伤”,也可以被读成“适应”。
目前的数据无法区分这两种解读——它只证明了变化是真实的,没有证明变化是坏的。唯一那个偏向”坏”的证据是星状病毒载量升高,而这是单一实验、单一病毒、单一指标。
正因如此,最后关于临床实践的那段话需要谨慎对待。“重新评估把婴儿携带视为良性的惯例”这句话,作者措辞其实非常克制——说的是“重新评估”,不是“应当治疗”。但这类句子在传播中容易变成”婴儿携带艰难梭菌需要治疗”,就偏离了原文——论文讨论的是预防毒素损伤,而非清除定植本身。
理由很直接:目前没有证据表明清除定植能给无症状婴儿带来净收益,而清除的代价是明确的。抗生素处理一个无症状状态,必然扰动正在建立的菌群——而论文自己的数据显示,艰难梭菌定植本身并未显著改变早期菌群的演替。也就是说,很可能是治疗的扰动大于细菌的扰动。更何况到 2 岁累计有约 75% 的婴儿被定植,这意味着任何以清除为目标的方案都会变成一场针对大多数婴儿的干预,微小副作用也会被放大为公共卫生问题。
值得注意的是,这篇论文选择的路径并不是清除——母体疫苗针对毒素,细菌仍留在肠道里。
不杀菌、不扰动生态,只中和那个有害分子。如果这条路走得通,它在成本-收益结构上远优于抗生素干预。但同样要说清楚,那还只是小鼠数据。
最后,小编还是想把这项研究放在一个更长的脉络里看。过去二十年,”发育起源假说”(DOHaD)的核心洞见是:许多成年期疾病的根源可以追溯到生命最初的窗口期。而微生物组研究给这个假说提供了一个具体的作用机制。这项研究的真正贡献,或许不在于它对艰难梭菌下了什么判决——它其实没有下判决——而在于它示范了一种研究范式:当判断一个早期微生物是否”有害”时,不能只看它是否引起症状,而要看它是否改变了发育本身。
按这个标准重新审视婴儿肠道里的其他“沉默住客”,恐怕不止艰难梭菌一个需要重新体检。这大概是这篇论文留下的最有价值的问题。
总而言之,这项工作把艰难梭菌从”成年病人的致病菌、婴儿肠道的无害过客”重新定义为一个被低估的早期生命病原体:它在婴儿不发热、不腹泻的平静表象下,悄然改写肠道干细胞的分化程序和黏膜免疫的发育轨迹,并把痕迹留到成年。对于临床,这提示重新审视婴儿期艰难梭菌检测与管理的边界;对于公卫,这为理解工业化与免疫代谢疾病的关联投下了一道新的光。