-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
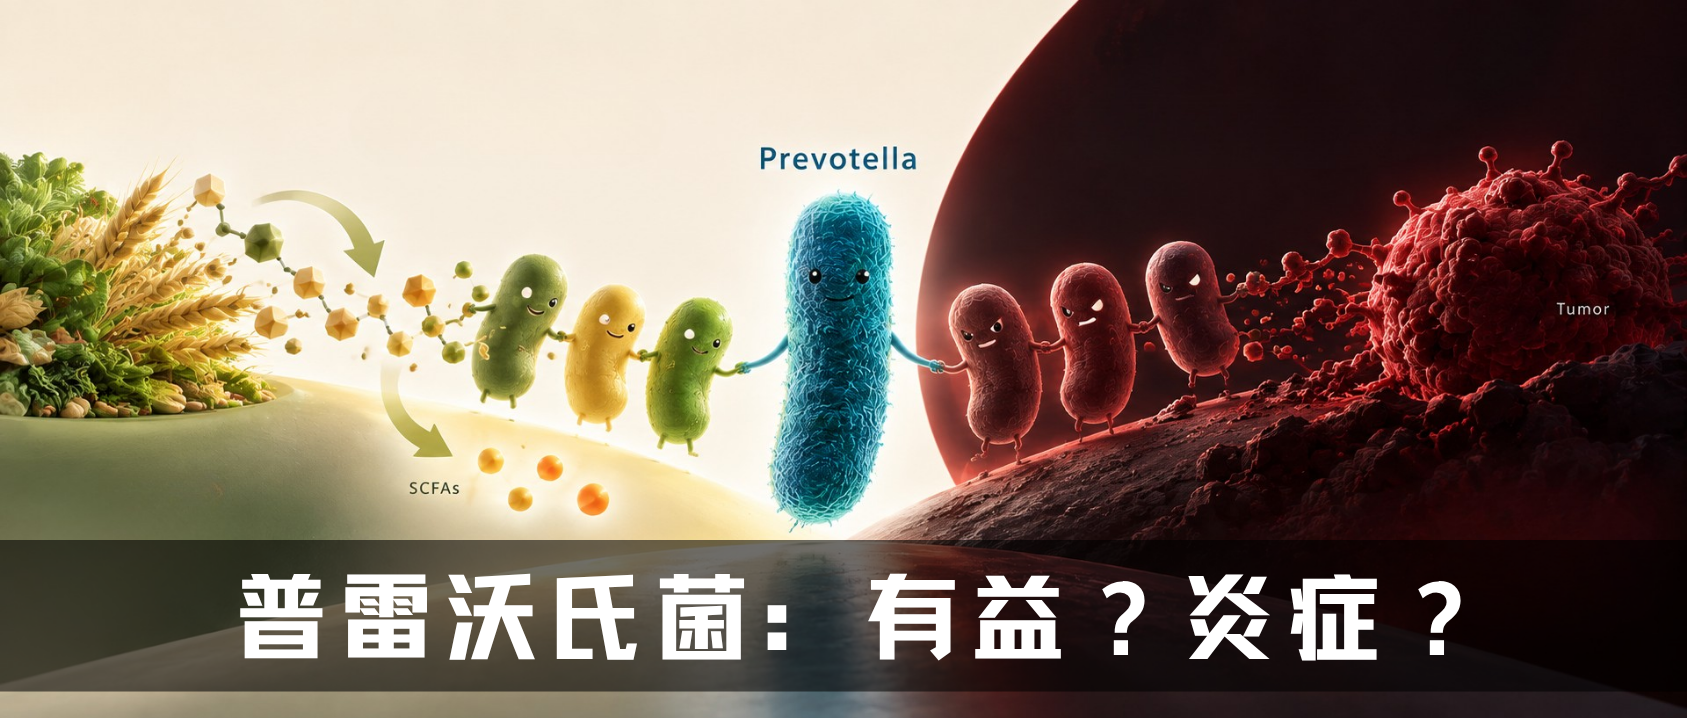
普雷沃氏菌属(Prevotella)在肠道内占据着极其特殊而复杂的地位。作为拟杆菌门的重要基石成员,普雷沃氏菌广泛定植于人群的肠道、口腔及泌尿生殖道,并因其卓越的复杂植物性碳水化合物分解能力,被确立为非西方化传统高纤维饮食人群肠道微生态的核心代表(普雷沃氏菌型)。
普雷沃氏菌在医学界呈现出令人困惑的“功能悖论”与“双刃剑”效应:一方面,它被视为发酵膳食纤维、合成保护性短链脂肪酸并维护宿主代谢与黏膜稳态的基石有益菌;另一方面,多项临床与流行病学研究将其与牙周炎、细菌性阴道病、类风湿性关节炎、代谢综合征以及胃肠道恶性肿瘤的恶化直接关联。
这种“天使与恶魔”并存的矛盾现象,使普雷沃氏菌属成为微生物学界最引人入胜、也最具转化挑战的研究对象之一。
随着宏基因组学与高通量测序的普及,人们逐渐解开了其“属水平丰度”背后的复杂性。研究者发现,普雷沃氏菌属并不是一个功能完全一致的整体,不同物种、不同菌株之间在碳水化合物利用、黏液降解、代谢产物生成、宿主黏附以及免疫调控等方面存在显著差异。换言之,“普雷沃氏菌增多”本身并不能直接等同于健康,也不能简单地被视为疾病标志。
菌株、饮食、群落、位置
决定功能方向的第一层,饮食提供了什么底物
微生物的功能都需要底物。一个拥有复杂多糖发酵能力的菌株,生活在富含阿拉伯木聚糖、果聚糖和其他可发酵纤维的肠道里,与长期生活在低纤维、高脂肪、高动物蛋白环境中的同类,代谢状态并不相同。
欧美人群的多是高脂代谢菌株,东亚人群多为谷物纤维代谢菌株。
同样一套代谢机器,输入不同,输出自然不同
高纤维饮食提供大量植物多糖(长期摄入全谷物、豆类、根茎、蔬菜等食物),容易把整个生态系统的碳流推向发酵和短链脂肪酸网络。
西方化饮食则改变可利用底物结构(高脂、高动物蛋白、低纤维饮食),也改变胆汁酸、黏液层、氧化还原状态和菌群竞争关系。
注:其他因素比如肠道转运速度会影响细菌可利用底物和停留时间;黏膜通透性决定细菌是否容易接触免疫系统;胆汁酸组成改变不同菌的竞争优势;慢性炎症提高硝酸盐、ROS 等电子受体水平;抗生素会突然清空部分竞争者;质子泵抑制剂改变胃酸屏障…这些背后都是很具体的一整套适合某些菌株生存的宿主环境。
决定功能方向的第二层,“邻居”改变它发挥作用的方式
真实肠道里没有任何细菌独自生活。
普雷沃氏菌周围可能是具核梭杆菌,也可能是普拉梭菌;可能处在慢性炎症已经形成的菌群网络中,也可能生活在一个短链脂肪酸生产和交叉喂养高度活跃的稳定社区里。
谷禾凭借专利菌群注释方法,可以基于菌群结构来精细化推断区分近似菌种,实现普雷沃氏菌的细分分型。
它所在生态网络允许什么样的代谢关系存在
如果P. intermedia与Fusobacterium nucleatum同时富集,炎症信号、上皮屏障破坏和免疫抑制可能相互叠加。反过来,普雷沃氏菌产生的乙酸、琥珀酸等中间代谢物,也可以成为其他共生菌的底物,经交叉喂养继续转化为丁酸。
这时候,即使两份肠道菌群检测报告同时都显示“Prevotella丰度占比10%”,其生态含义就不同了。
编辑
决定功能方向的第三层,它住在哪里,决定它面对什么生态位
微生物拥有自己的基因组,但它表现出来的功能,是基因组与所在组织共同“计算”的结果。
P. intermedia在牙周袋里,与它出现在健康结肠腔内,并不是同一件事。
牙龈沟有血红素、炎症渗出、氧化还原改变和持续的组织损伤;
结肠则有厚厚的黏液层、极低氧环境、不同的碳源以及高度组织化的黏膜免疫系统。
食物底物、短链脂肪酸、琥珀酸等
它的核心竞争力,是处理别人吃不动的复杂碳水
普雷沃氏菌属最值得关注的基础生物学,是它对复杂碳水化合物的处理能力。
很多普雷沃氏菌属的基因组里存在成套的多糖利用位点(Polysaccharide Utilization Loci,PULs)。
简单说,一套 PUL 不是单独的一种酶,而是一整套从“识别-抓取-切割-运输-继续降解”串在一起的系统。
外膜上的 SusD 样蛋白负责识别特定多糖,邻近糖苷水解酶把大分子切成较短片段,SusC 类转运蛋白再把寡糖送进周质空间,后续脱支酶和水解酶继续拆解,最终送入中心碳代谢和发酵网络。
因此,高纤维饮食与普雷沃氏菌属丰度之间的关系,本质上是一场生态选择——谁最擅长利用每天源源不断进入肠道的底物,谁就更容易获得增长优势。
高纤维饮食之后,看这些底物最终被怎样利用
复杂多糖经普雷沃氏菌处理之后,可以进入琥珀酸途径,生成乙酸、丙酸等代谢产物;某些与保护性表型相关的菌株,如P. melaninogenica、P. rothiae,又与丁酸相关的代谢网络联系在一起。
这些代谢物随后被宿主上皮吸收,也可能被其他细菌继续利用。
这意味着,“普雷沃氏菌属丰度上升”只是生态变化的第一层。再往下一层,需要看它是否伴随丙酸、丁酸等功能产物增加;继续往下,还可以观察宿主屏障、免疫细胞和代谢表型是否随之改变。
这也是为什么,单纯说“吃纤维可以增加某一种菌”其实略显粗糙。更需要观察的是,碳最终流向哪里。
发酵能力相似,代谢输出可以完全不同
琥珀酸在这里尤其有意思。
它既可以是细菌代谢网络中的正常中间产物,也可以在特定失衡状态下大量积累。研究表明,过多琥珀酸进入上皮细胞后,可影响 HIF-1α 稳定性以及细胞应激状态,并进一步牵动内质网应激和炎症反应。
于是,一个原本属于“碳水发酵”的代谢节点,开始与上皮损伤和慢性炎症连接起来。
这就是微生物代谢研究里一个很重要的思维方式:同一种代谢物,在不同浓度、不同组织位置以及不同宿主状态下,可能产生完全不同的生物学效应。
短链脂肪酸如此,琥珀酸也是如此。
P. copri 的争议,还提示了另一条代谢分叉:支链氨基酸
在部分菌株中,与亮氨酸、异亮氨酸等支链氨基酸合成相关的基因更丰富;在特定饮食和宿主代谢背景下,这类代谢能力被认为可能参与胰岛素抵抗相关表型。
也就是说,讨论P. copri时,还需要看“它是哪一个株系、携带哪些代谢模块”。
从复杂多糖到短链脂肪酸,从琥珀酸到支链脂肪酸,普雷沃氏菌更像一个具有高度可塑性的代谢平台。
环境决定哪一套程序获得优势。
想了解更多细节的朋友可以滑动阅览:
普雷沃氏菌属于拟杆菌门、拟杆菌纲、拟杆菌目、普雷沃氏菌科,多为革兰氏阴性、无芽孢、无鞭毛的专性厌氧杆菌。
其外膜含 LPS;部分物种具有 IX 型分泌系统(T9SS),可将黏附蛋白、蛋白水解酶及其他底物转运至细胞表面,部分分子也可通过外膜囊泡(OMVs)进入周围环境。
不同物种和菌株基因组差异较大,部分菌株还携带 β-内酰胺、大环内酯、四环素相关抗性基因及可移动遗传元件。
对于理解炎症和菌株安全性,以上这些结构特征也很重要。
<向上滑动阅览>
前面这些菌株、饮食和群落差异,最终会落到宿主身上。
在高膳食纤维环境中,部分 Prevotella参与复杂碳水发酵,产生乙酸、丙酸、琥珀酸等代谢物,并通过交叉喂养支持其他产丁酸菌,从而提高整个群落的短链脂肪酸输出。增加的丁酸等短链脂肪酸,有利于维持肠屏障和免疫稳态。
编辑
另一方向上,某些促炎相关Prevotella 菌株可以通过 LPS 和其他微生物组分激活TLR4/NF-κB、TLR2-Th17-IL-17 等炎症通路;琥珀酸等代谢变化还可能增加上皮应激和屏障损伤。持续的炎症与屏障破坏相互强化,局部环境便逐渐从短暂免疫反应转向慢性炎症。
编辑
doi.org/10.3389/fonc.2026.1855577
当这种促炎状态长期存在,它又会怎样进入肿瘤生态?
从单向作用到生态反馈
肿瘤组织自己就是一个特殊生态位。
这里有缺氧、有坏死、有异常血管、有代谢重编程,还有大量功能失调的免疫细胞。这样的环境可以反过来筛选适合在其中生存的细菌。
编辑
某些细菌促进炎症和组织损伤,组织变化又为这些细菌提供新的生态位;细菌继续改变局部代谢与免疫状态,肿瘤细胞也在不断重塑自己的周围环境。
因此,在肿瘤组织里发现普雷沃氏菌属,既可能记录肿瘤生态环境已经发生改变,也可能意味着其中某些菌株参与维持这种环境。
编辑
doi.org/10.3389/fonc.2026.1855577
它经常和具核梭杆菌一起出现
结直肠癌微生物学里,具核梭杆菌(Fusobacterium nucleatum)已经被研究多年。
它拥有FadA、Fap2等黏附和免疫调节相关分子,可以影响 E-cadherin/Wnt-β-catenin 通路、NK/T 细胞功能以及髓系抑制细胞募集。
有意思的是,一些肿瘤样本中 P. intermedia、P. nigrescens 等口源性普雷沃氏菌会和具核梭杆菌共同富集。
两者一旦进入同一个病灶,作用可能发生叠加
具核梭杆菌提供强黏附和免疫逃逸能力
普雷沃氏菌则可能增强蛋白水解、炎症和屏障破坏;
NF-κB、NLRP3、Wnt/β-catenin、STAT3 等信号网络因此彼此衔接。
编辑
doi.org/10.3389/fonc.2026.1855577
这类“微生物协同致癌”证据在体外实验、动物研究以及部分人群观察中都已出现,但人体层面的完整因果链仍需要纵向和干预研究继续验证。
这其实比寻找“某一种癌菌”更接近肿瘤真实生态:
肿瘤里值得研究的单位,很可能不是一种菌,而是一组协同工作的微生物网络。
口-肠轴与异位定植
每天都有大量口腔细菌随唾液进入消化道。大多数时候,它们难以在稳定的下消化道生态系统里建立长期优势。
但牙周炎、胃肠屏障损伤、局部炎症、药物和菌群失衡会改变这一门槛。
编辑
doi.org/10.3389/fonc.2026.1855577
P. intermedia、P. nigrescens等口源菌就可能通过吞咽进入消化道,也可能在牙龈屏障破损时进入循环。对于已经具有坏死、缺氧和黏膜结构破坏的肿瘤组织,这些菌获得了定植机会(此前没机会定植)。
微生物影响肿瘤,还深入到表观遗传层面
慢性炎症不仅改变细胞因子浓度,也会影响宿主细胞的转录和表观遗传程序。在普雷沃氏菌相关研究中:
一条路线涉及 DNA 甲基化
长期 IL-6、IL-1β 等炎症信号可影响 DNMT 等 DNA 甲基转移酶,从而改变包括 CDKN2A/p16 在内的抑癌相关基因表达。
另一条更前沿的路线涉及 m6A RNA 修饰
已有研究把普雷沃氏菌相关炎症环境与METTL3 上调联系起来;METTL3 介导的 m6A 修饰可以改变 c-Myc、STAT3 等转录本稳定性,也与 PD-L1 mRNA 稳定性及免疫逃逸相关。
它出现在癌变过程的哪一步?
结直肠癌研究里,P. intermedia 是目前相对受关注的物种之一。
2022 年的一项研究在结直肠腺癌组织中发现P. intermedia富集,并观察到它与具核梭杆菌共同存在时,对癌细胞迁移和侵袭表现出叠加效应。随后还有研究在控制肠道转运时间、粪便钙卫蛋白和 BMI 等混杂因素后,继续观察到P. intermedia与结直肠癌的相关性。
这类证据开始连接组织定位、菌群协同和功能实验。可人体癌变往往跨越十几年甚至几十年。研究者最终需要解决的是时间顺序:菌群改变是在腺瘤之前就出现,还是在肿瘤改变局部环境之后才显著富集?它参与的是癌变启动、进展、免疫逃逸,还是治疗耐药?
这也是为什么纵向队列尤其关键。
胃癌、口腔癌、食管癌,呈现出不同的组合
胃癌中,肿瘤来源的P. intermedia 与疾病进展之间已有研究联系,其中包括 PLIN3 等宿主通路。
口腔鳞状细胞癌的证据更贴近其原生生态位。患者-对照研究发现P. intermedia检出差异,实验研究则观察到其可促进肿瘤细胞增殖、侵袭和炎症因子释放;较新的研究还把肿瘤内P. intermedia与 ISG15、M2 型巨噬细胞极化和免疫抑制微环境连接起来。
食管鳞癌研究中,P. nigrescens 感染与 Ki67、p-STAT3 等增殖信号升高有关。
Prevotella 并不只生活在肠道。口腔、阴道等黏膜部位都可以发现这个菌属,而不同部位提供的营养、氧化还原状态、邻近菌群和免疫环境并不相同。
为什么某些普雷沃氏菌在牙周袋这样的环境里容易扩增?
口腔是普雷沃氏菌属最重要的生态位之一。特别是P. intermedia、P. nigrescens 等产黑色素厌氧菌,与牙周疾病长期联系在一起。
牙龈炎症时,组织出血增加,血红素和铁资源大量进入牙周袋;与此同时,局部氧化还原环境下降,更适合厌氧菌生长。
吸烟为什么也会和口腔 Prevotella 联系起来?
吸烟并不是单纯把某种细菌吸进嘴里。它改变的是局部氧化还原状态、免疫反应、唾液环境和黏膜状态,因此可以重新排列口腔微生物竞争关系。
吸烟者口腔中P. melaninogenica、P. pallens 等物种可发生富集;如果同时存在口腔卫生差、吞咽功能异常等情况,口腔厌氧菌还可能进入下呼吸道。
这里再次说明:生活方式和微生物之间的关系,往往通过改变生态位实现。
P. intermedia的血红素利用和乳铁蛋白相关铁获取能力,这些特征让它在炎症牙周袋中的竞争力明显提高。
牙周炎改变环境 → 环境选择Prevotella → Prevotella 加重局部炎症和组织破坏 → 新的营养和生态位继续释放
编辑
阴道:群落结构决定它能不能扩张
阴道微生态提供了另一个很典型的例子。
健康状态下,乳杆菌通常占据优势,并通过维持较低 pH等方式限制其他微生物扩张。
当乳杆菌减少、乳酸下降、pH 上升,这种稳定结构被打破后,Prevotella bivia等厌氧菌获得新的生态空间。
随后又会出现微生物之间的代谢互利。例如 P. bivia 与 Gardnerella vaginalis可以通过代谢物交换促进彼此生长,帮助致病性生物膜形成。
注:这和肠道里的 普雷沃氏菌和具核梭杆菌协同并不是同一个机制,却在生态学上讲的是同一件事:环境先改变竞争规则,随后微生物之间的合作进一步稳定新的失衡状态。
从黏膜到关节:影响还可以延伸到远端
环境依赖性还有一个更复杂的层面:微生物生活在黏膜,但它引起的免疫变化未必停留在原来的位置。
类风湿关节炎是其中较受关注的例子。
部分研究发现,P. copri与类风湿关节炎人群中的菌群变化存在关联,而 Prevotella相关的 TLR、Th17 和 IL-17 等免疫通路,也被用于解释黏膜微生物变化与远端炎症之间可能存在的连接。
在特定类风湿关节炎模型和宿主背景下,高纤维饮食与 P. copri甚至可能协同加重炎症。
注:营养学进入微生态时代以后,一个越来越清楚的方向,就是从“这种食物平均有什么作用”,走向:这种底物,在这个人的这套菌群里,会被谁利用,最后生成什么?
神经、过敏、IBS 、多发性硬化研究
部分儿童队列中,自闭症谱系障碍与较低 Prevotella丰度出现相关;
一些婴幼儿研究观察到P. copri定植与食物过敏风险存在关系;
多发性硬化动物研究中,Prevotella histicola 显示出增加 Treg、降低 Th17 相关炎症的潜力。
腹泻型肠易激综合征和部分慢性黏膜炎症研究又发现某些Prevotella富集。
这也说明,这个菌属的生物学意义高度依赖宿主免疫状态、组织生态位和具体菌株。
微生态研究早期,人们很自然地希望找到,哪些菌有益,哪些菌有害;少了就补,多了就杀。这很容易理解,也很方便传播。
普雷沃氏菌,也许正使我们放弃“好菌坏菌”的那套思路。
它可以出现在高纤维、短链脂肪酸丰富的肠道生态中;也可以参与 Th17 型慢性炎症。
它可以通过代谢物帮助维护屏障和 Treg 稳态;某些菌株又可以借助 LPS、T9SS、OMVs 和其他机制推动组织损伤。
它可以是人体长期共生生态系统的一部分,也可以在牙周炎、肠道失衡或肿瘤形成的新生态位中获得完全不同的功能位置。
谷禾凭借积累的海量肠道菌群样本,深度提取菌群构成结构中隐含的信息,从不同的健康轴洞察普雷沃氏菌的健康影响。基于健康轴和菌群结构,我们将全面量化普雷沃氏菌的个性化干预策略,让菌群调整更精准。
相关阅读:
肠道重要基石菌属——普雷沃氏菌属 Prevotella
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
主要参考文献
向上滑动阅览
Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75:10–45.
Dammeijer F, et al. The PD-1/PD-L1-checkpoint restrains T cell immunity in tumor-draining lymph nodes. Cancer Cell. 2020;38:685–700.e8.
Lu Z, Tang D. The dual roles of Prevotella in gastrointestinal tumorigenesis: from molecular mechanisms to therapeutic prospects. Frontiers in Oncology. 2026;16:1855577.
Wong CC, Yu J. Gut microbiota in colorectal cancer development and therapy. Nat Rev Clin Oncol. 2023;20:429–52.
Tett A, et al. Prevotella diversity, niches and interactions with the human host. Nat Rev Microbiol. 2021;19:585–99.
Fehlner-Peach H, et al. Distinct polysaccharide utilization profiles of human intestinal Prevotella copri isolates. Cell Host Microbe. 2019;26:680–690.e5.
Gálvez EJC, et al. Distinct Polysaccharide Utilization Determines Interspecies Competition between Intestinal Prevotella spp. Cell Host Microbe. 2020;28:838–852.e6.
Larsen JM. The immune response to Prevotella bacteria in chronic inflammatory disease. Immunology. 2017;151:363–74.
Hao QY, et al. Prevotella copri promotes vascular calcification via lipopolysaccharide through activation of NF-kB signaling pathway. Gut Microbes. 2024;16:2351532.
Tannahill GM, et al. Succinate is an inflammatory signal that induces IL-1b through HIF-1a. Nature. 2013;496:238–42.
Urra H, et al. Endoplasmic reticulum stress and the hallmarks of cancer. Trends Cancer. 2016;2:252–62.
Gur C, et al. Binding of the Fap2 protein of Fusobacterium nucleatum to human inhibitory receptor TIGIT protects tumors from immune cell attack. Immunity. 2015;42:344–55.
Lo CH, et al. Enrichment of Prevotella intermedia in human colorectal cancer and its additive effects with Fusobacterium nucleatum on the Malignant transformation of colorectal adenomas. J Biomed Sci. 2022;29:88.
Cogrossi LL, et al. Microbiome modulation uncouples efficacy and toxicity induced by immune checkpoint blockade in mouse multiple myeloma. Nat Commun. 2025;16:65312.
Furusawa Y, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature. 2013;504:446–50.