-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
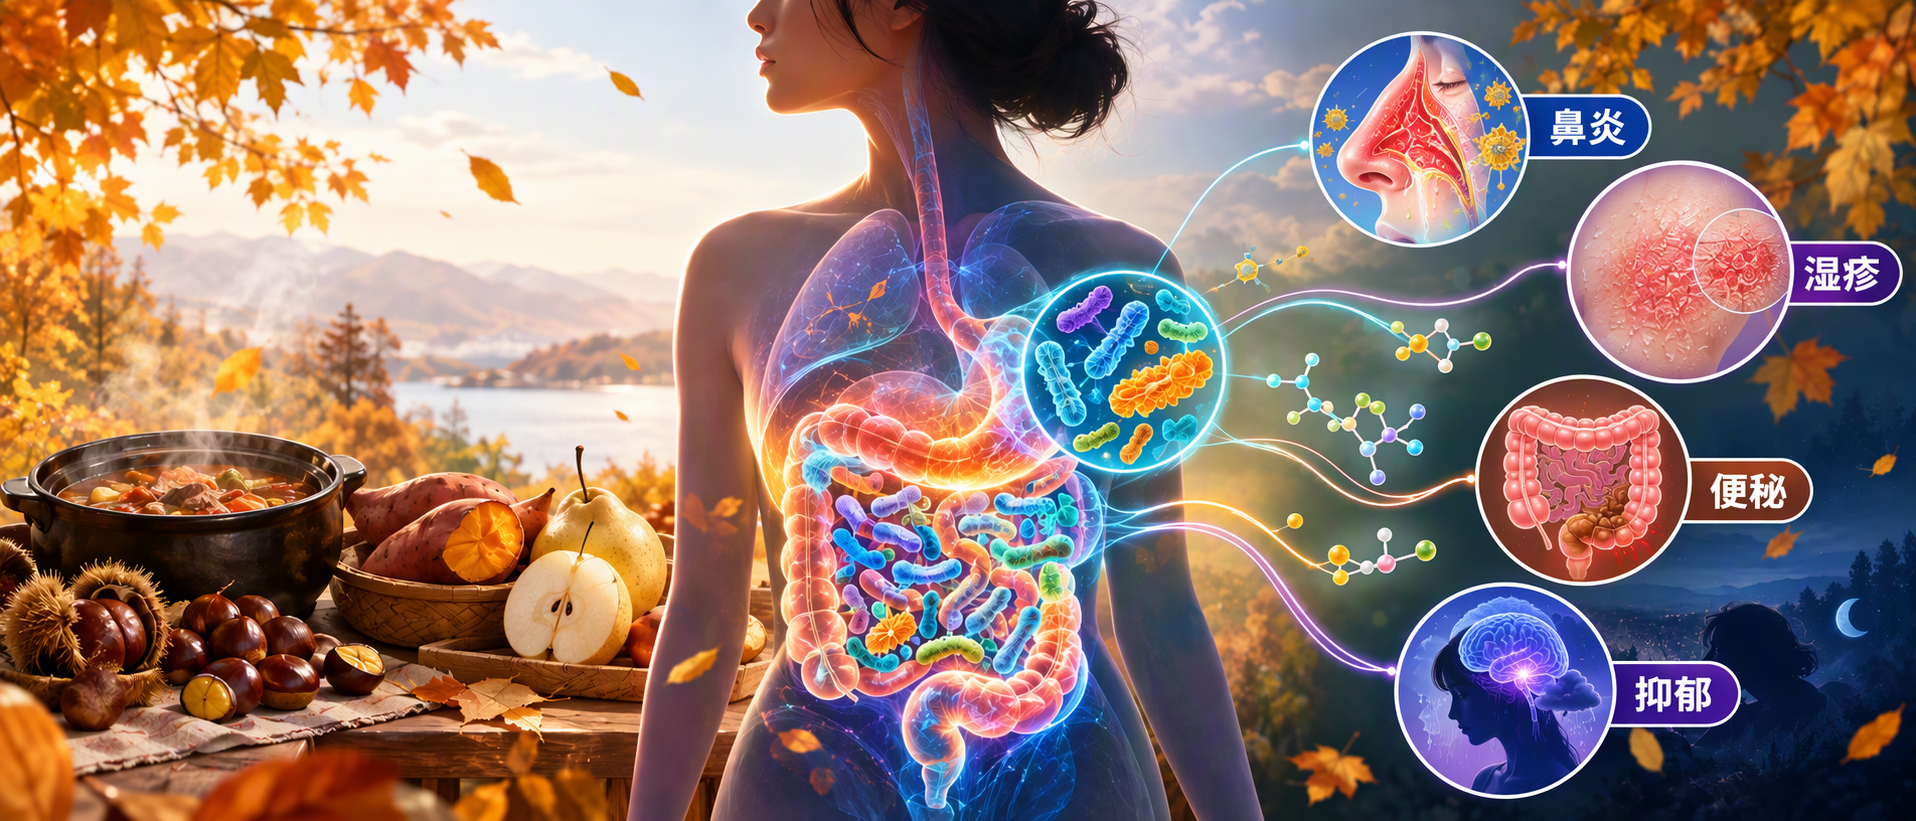
从秋分到寒露,温差骤大、草木转黄,我们的餐桌也悄然换季——夏日的西瓜冷饮退场,热气腾腾的炖菜、板栗、红薯与秋梨纷纷登场。
然而,身体的“秋燥反应”也接踵而至:喷嚏流涕止不住、皮肤干燥湿疹复发、排便干结腹胀,甚至莫名陷入失眠与“悲秋”情绪……
很多人将这些归咎于干燥或着凉,但你体内的“第二基因组”其实早已察觉。谷禾健康基于14.6万余份真实世界检测样本发现,中国人群的肠道菌群存在显著的季节节律:入秋后,发酵代谢相关的菌群(如 Phascolarctobacterium升高29.0%、巨单胞菌升高27.2%)出现剧烈波动。
肠道菌群也有季节节律:来自谷禾健康 14.6 万份样本的真实世界观察
庞大的样本提示我们人体肠道菌群季节生态节律与“四时取象”理念,人体微生态在秋季面临气温骤降、日照缩短与秋燥应激的考验。
肠道不仅消化食物,更通过短链脂肪酸、胆汁酸与色氨酸代谢,遥控着我们的肺气道、皮肤屏障与大脑神经。为什么秋天肠道一“变阵”,鼻炎、湿疹、便秘与抑郁便组团来袭?我们又该如何顺应菌群节律,来精准贴秋膘?
本文将结合最新微生态研究与临床证据,带你从微观世界看懂身体的秋季警报,找到一套标本兼顾的秋季健康新方案。
过敏性鼻炎 / 结膜炎:短链脂肪酸减少,削弱过敏免疫调节
秋季部分地区的蒿属、豚草等杂草花粉较多,吸入后可诱发IgE介导的过敏反应,使肥大细胞释放组胺等炎症介质,导致鼻痒、喷嚏、流涕、鼻塞、眼痒、充血、流泪等症状。冷空气及干燥环境还可能加重鼻黏膜刺激,结膜炎患者会加重眼部不适。
肠道菌群可能通过调节性T细胞(Treg)、Th2型免疫反应及短链脂肪酸代谢参与过敏免疫调节。
过敏性鼻炎
Watts等研究发现,过敏性鼻炎患者肠道中副拟杆菌属(Parabacteroides)增加、草酸杆菌属(Oxalobacter)减少。另一项研究则发现,患者肠道中布劳特氏菌属(Blautia)、多雷菌属(Dorea)及Subdoligranulum等减少,伴随粪便短链脂肪酸水平降低。
丁酸等短链脂肪酸能够维持肠道屏障功能,并促进Treg介导的免疫调节。当相关代谢功能下降时,机体对过敏炎症的抑制作用可能减弱,使Th2型免疫反应更容易放大,促进IL-4、IL-5及IgE相关反应,进而加重鼻黏膜炎症。
肠道微生物群失调如何影响过敏性鼻炎
Li J, et al., Eur Arch Otorhinolaryngol. 2022
扩展阅读:
肠道微生物群在过敏性鼻炎中的作用
过敏性结膜炎
Liu等利用大规模人群遗传数据进行孟德尔随机化分析,发现霍尔德曼菌属(Holdemanella)、链杆菌属(Catenibacterium)、瘤胃球菌科UCG-002组(Ruminococcaceae UCG-002)的遗传预测丰度较高,与较低的过敏性结膜炎风险相关。
2024年另一项研究发现,克里斯滕森菌科R-7组(Christensenellaceae R-7 group)及毛螺菌科FCS020组(LachnospiraceaeFCS020 group)也呈现提示性的保护关联。
部分瘤胃球菌科微生物参与胆汁酸转化,其代谢产物可通过FXR、TGR5等受体影响免疫调节;肠道微生物产生的丁酸等短链脂肪酸,也可能促进Treg功能,抑制过度活跃的Th2型免疫反应。 当免疫耐受能力下降时,IL-4、IL-13等炎症信号可能增强IgE相关反应,促进眼部过敏炎症。
支气管哮喘:肠道丁酸不足,放大IgE介导的气道炎症
秋季是部分地区儿童哮喘急性发作的高峰期,尤其在开学后更为明显。学校人员聚集增加了鼻病毒等呼吸道病毒的传播机会,病毒感染可损伤气道上皮,激活炎症反应,使原本处于高反应状态的支气管更容易收缩,并伴随黏液分泌增多,引起喘息、胸闷、夜间咳嗽,严重时甚至出现呼吸困难。花粉暴露和气温变化也可能进一步增加发作风险。
肠道菌群可能通过“肠-肺轴”参与气道免疫调节。Chen等对66名哮喘患儿和35名健康儿童进行比较,发现哮喘患儿肠道中拟杆菌属(Bacteroides)增加,粪杆菌属(Faecalibacterium)及韦荣球菌属(Veillonella)减少,同时伴随IgE、IL-4、IL-5、IL-13水平升高及Th1/Th2免疫失衡。
涉及哮喘的简化细胞机制及其与微生物的相关性
2026年Miyachi等对300名儿童开展肠道宏基因组分析,发现普通拟杆菌(Bacteroides vulgatus)、Bacteroides uniformis等与肺功能指标存在关联,而溴瘤胃球菌(Ruminococcus bromii)和Alistipes indistinctus在特定遗传风险儿童中表现出提示性的保护关联。
研究发现,哮喘患者粪便及血浆丁酸水平降低。进一步的机制实验表明,丁酸可通过GPR43受体抑制p38 MAPK/NF-κB信号,限制Tfh13细胞活性,从而减少过敏原特异性IgE产生及气道炎症。
扩展阅读:
「哮喘」最新研究已逐步渗透到更精细层面
特应性皮炎与湿疹:秋燥加重皮肤屏障损伤
秋季空气湿度下降,皮肤水分流失增加,容易使特应性皮炎患者出现干燥、红斑、脱屑、剧烈瘙痒。特应性皮炎是常见的湿疹性疾病之一,其核心问题不仅是皮肤缺水,还包括皮肤屏障功能缺陷及免疫炎症异常。屏障受损后,外界刺激物更容易进入皮肤,形成“瘙痒—搔抓—屏障进一步受损”的恶性循环。
宏基因组分析发现,特应性皮炎患者肠道中部分瘤胃球菌科(Ruminococcaceae)、阿克曼菌科(Akkermansiaceae)细菌减少,同时伴随脂肪酸、维生素及氨基酸相关代谢通路改变。
丁酸等短链脂肪酸能够促进Treg功能,帮助维持免疫耐受;当相关代谢功能异常时,免疫调节能力可能受到影响。过度活跃的Th2型免疫反应可产生IL-4、IL-13等炎症因子,抑制丝聚蛋白(Filaggrin)等皮肤屏障蛋白的表达,使皮肤更容易失水、受到刺激并产生瘙痒。
荨麻疹:肺炎克雷伯菌增多,肠道屏障受损,加重肥大细胞炎症
荨麻疹主要表现为突然出现的风团、皮肤瘙痒,部分患者还可伴随血管性水肿。其核心机制是肥大细胞活化并释放组胺等炎症介质,导致皮肤血管扩张、通透性增加。秋季气温下降,冷空气可能诱发寒冷诱导性荨麻疹,但与病因复杂、反复发作的慢性自发性荨麻疹(CSU)并不相同。
近年来研究发现,肠道菌群可能通过影响肠道屏障和微生物代谢产物,参与慢性自发性荨麻疹的炎症调节。
2024年Zhu等在《Nature Communications》发表研究,发现慢性自发性荨麻疹患者肠道中肺炎克雷伯菌增加,而人源罗斯氏菌(Roseburia hominis)等短链脂肪酸产生菌减少,同时伴随血液短链脂肪酸水平降低、脂多糖(LPS)水平升高。其中,肺炎克雷伯菌丰度与疾病活动程度相关。
2025年Podder等的人体研究同样发现,患者肠道中产短链脂肪酸菌减少、条件致病菌增多,部分菌群变化与荨麻疹活动程度及疾病控制情况相关。
慢性荨麻疹中肠道菌群的改变及影响
Cai R,et al.Gut Microbes.2024
短链脂肪酸减少会削弱肠道屏障的保护作用,使细菌来源的脂多糖更容易进入血液循环。 脂多糖可通过TLR4等炎症信号增强肥大细胞的活化反应,促进组胺、IL-4和IL-13等炎症介质释放,进而加重皮肤风团及瘙痒。
相关阅读:
“免疫皮肤病”——慢性荨麻疹的发病、症状以及治疗改善新视角
银屑病(牛皮癣):产丁酸菌减少,通过IL-23/Th17通路加重皮肤炎症
银屑病(俗称牛皮癣)是一种慢性免疫介导的炎症性皮肤病,典型表现为边界清晰的红色斑块,表面覆盖银白色鳞屑。部分患者在秋冬季因日照减少、皮肤干燥及感染等因素出现症状加重。其核心病理机制是IL-23/Th17免疫通路过度活跃,促进IL-17、IL-22等炎症因子释放,引起角质形成细胞异常增殖和皮肤炎症。
编辑
Liu S, et al., Cell Communication and Signaling, 2024
Xiao等对70名银屑病及银屑病关节炎患者和25名健康对照进行宏基因组分析,发现患者肠道中直肠真杆菌(Eubacterium rectale)及部分阿利斯特菌属(Alistipes)菌种减少,其中银屑病关节炎患者的直肠真杆菌下降更明显。这些菌群与碳水化合物发酵及短链脂肪酸代谢有关。
2025年另一项纳入128人的病例对照研究发现,普氏粪杆菌(Prevotella copri)及埃格特菌科(Eggerthellaceae)与银屑病存在风险关联,而厚壁菌门中的Anaerostipes hadrus、Blautia wexlerae等表现出潜在保护关联。
编辑
丁酸等短链脂肪酸具有维持肠道屏障、促进Treg细胞功能及调节炎症反应的作用。 当相关代谢功能下降时,肠道屏障及免疫调节可能受到影响,促使IL-23/Th17炎症通路更加活跃。Th17细胞分泌的IL-17、IL-22可进一步刺激角质形成细胞增殖,促进炎症细胞募集,加重皮肤红斑和鳞屑。
相关阅读:
牛皮癣看似皮肤病,实则关系到肠道
牛皮癣发作和复发的触发因素
便秘:产丁酸菌减少、胆汁酸代谢异常,影响肠道蠕动
秋季天气转凉后,部分人饮水量和运动量减少,加上膳食纤维摄入不足,容易出现大便干硬、排便费力及排便次数减少等问题。
中医常将这类表现与“秋燥伤津、肠道失润”联系起来。现代医学则认为,便秘主要与结肠传输减慢、粪便含水量减少及排便协调功能异常有关。
近年来研究发现,肠道菌群可能通过短链脂肪酸、胆汁酸及肠神经信号参与肠道动力调节。
Han等对24名慢传输型便秘患者和24名健康对照进行宏基因组分析,发现患者肠道中长双歧杆菌、Gordonibacter pamelaeae增加,而Roseburia intestinalis和伴生粪球菌(Coprococcus comes)减少,同时伴随胆汁酸和胆固醇代谢相关功能变化。
2026年一项纳入101人的研究也发现,慢性功能性便秘患者肠道中粪杆菌属(Faecalibacterium)、罗斯氏菌属(Roseburia)减少,而克雷伯菌属(Klebsiella)增加。
2025年另一项多组学研究则观察到,功能性便秘患者的鹅去氧胆酸水平降低。
饮食、微生物群和结肠生理在便秘发病机制中的相互作用
编辑
涉及两条途径:
一是罗斯氏菌等微生物参与丁酸生成,影响结肠上皮及肠道环境;
二是肠道菌群通过胆汁酸转化,影响TGR5受体及肠嗜铬细胞的5-羟色胺(5-HT)释放。
5-羟色胺能够参与肠神经反射和肠道蠕动调节,因此胆汁酸代谢异常可能影响结肠推进运动,使排便更加困难。
相关阅读:
排便困难?便秘反复?不要忽视肠道菌群
肠易激综合征:菌群影响胆汁酸代谢,增强内脏敏感性
肠易激综合征(IBS)是一种常见的肠-脑互动障碍,主要表现为反复腹痛、腹胀,伴随腹泻、便秘或排便习惯改变。
秋季开学、工作节奏调整及饮食变化,可能通过精神压力、自主神经和肠道动力变化,使部分患者症状加重。其重要病理特征是内脏敏感性增高,即正常程度的肠道扩张或刺激也可能引起明显腹痛。
近年来研究发现,肠道菌群可能通过胆汁酸代谢、肠道屏障及神经免疫信号参与这一过程。
2024年Li等整合14个肠易激综合征菌群发现队列及多个干预队列,共9204份数据集,发现患者肠道中存在两类相对富集的微生物群,其中一类为通常存在于口腔的兼性厌氧菌,包括非典型韦荣球菌(Veillonella atypica)、殊异韦荣球菌(Veillonella dispar)及小韦荣球菌(Veillonella parvula)等,提示口腔来源微生物在肠道中的异常定植可能与疾病有关。
Zhan等对25名腹泻型肠易激综合征(IBS-D)患者和15名健康人进行分析,发现患者肠道中卵形拟杆菌(Bacteroides ovatus)减少,同时粪便总胆汁酸、初级胆汁酸及鹅去氧胆酸水平升高。
编辑
卵形拟杆菌参与胆盐水解酶(BSH)相关代谢,其减少可能影响胆汁酸转化,导致初级胆汁酸异常积累。 鹅去氧胆酸等胆汁酸可激活TGR5受体,影响肠道黏膜屏障和感觉神经信号,增强内脏敏感性,使患者更容易出现腹痛、腹泻等症状。
胃食管反流:肠道细菌过度生长与食管微生态异常,可能影响黏膜屏障
天气转凉后,部分人偏爱火锅、油腻食物和夜宵,若进食过多或餐后立即平卧,可能增加胃食管反流的发生机会。胃食管反流病(GERD)主要与食管下括约肌抗反流功能异常、胃内容物反流及食管黏膜屏障受损有关,典型症状为反酸、烧心,部分患者还可出现胸骨后不适。
近年来研究发现,胃食管反流与小肠细菌过度生长(SIBO)及肠道微生态变化可能存在联系。
Wang等对394名消化科患者进行研究,发现胃食管反流与小肠细菌过度生长存在显著关联,尤其与甲烷呼气试验阳性有关。其中24名接受粪便菌群测序的患者显示,合并胃食管反流和SIBO者存在普通拟杆菌(Bacteroides uniformis)和粪拟杆菌(Bacteroides stercoris)等菌群特征。
食管局部微生态与反流症状的机制联系也很紧密。2024年研究发现,胃食管反流症状患者的食管菌群中革兰阴性菌比例升高,尤其是假单胞菌属(Pseudomonas)相对富集,同时伴随TLR2表达升高、紧密连接蛋白Claudin-1减少及上皮细胞间隙扩大。
局部革兰阴性菌来源的脂多糖(LPS)可促进TLR2及IL-6相关炎症信号,抑制Claudin-1表达,削弱食管上皮屏障。 当反流物接触黏膜时,受损的屏障可能使感觉神经更容易受到酸及其他刺激物影响,从而加重烧心、反酸相关不适。
抑郁:产丁酸菌减少、色氨酸代谢异常,影响神经炎症与情绪调节
秋季白昼逐渐缩短、日照减少,部分人可能出现情绪低落、兴趣减退、疲劳、嗜睡及食欲变化。具有反复秋冬季发作特点的抑郁症状,可能属于季节性情感障碍。其发生与生物钟紊乱、褪黑素节律及血清素相关信号变化有关。
近年来研究发现,肠道菌群可能通过“肠-脑轴”参与情绪调节,尤其涉及短链脂肪酸、色氨酸代谢及神经免疫信号。
一项荟萃分析,纳入44项研究、共4883人,发现抑郁症患者肠道中丁酸球菌属(Butyricicoccus)、粪球菌属(Coprococcus)、粪杆菌属(Faecalibacterium)等减少,而埃格特菌属(Eggerthella)、肠球菌属(Enterococcus)、链球菌属(Streptococcus)等增加。
一项研究对400人进行多组学分析,发现抑郁相关人群肠道中氨基酸球菌属(Acidaminococcus)、克里斯滕森菌科R-7组(Christensenellaceae R-7 group)、巨球菌属(Megasphaera)等存在差异,同时伴随15种粪便代谢物变化。
几种心理障碍中的肠道菌群失调
编辑
Borrego-Ruiz A,et al. Prog Neuropsychopharmacol Biol Psychiatry.2023
涉及的主要途径:
一是产丁酸相关菌群减少,可能削弱肠道屏障及免疫调节,使炎症信号更容易影响神经系统;
二是肠道菌群可能通过炎症及代谢信号,影响色氨酸向犬尿氨酸(Kynurenine)等产物的转化。犬尿氨酸通路中的部分代谢物与神经炎症、谷氨酸信号及神经细胞功能有关。
Zhang等对86名抑郁症患者及120名健康人进行研究,发现布劳特氏菌属(Blautia)、Alloprevotella及巨单胞菌属(Megamonas)与犬尿氨酸/色氨酸比值呈正相关,提示菌群变化可能与色氨酸代谢及炎症调节有关。
扩展阅读:
中医药治疗抑郁症——来自肠道菌群的解释
抑郁症与肠道微生物群有何关联
焦虑:菌群与皮质醇、GABA代谢异常,参与应激反应
秋季开学、工作节奏调整及生活压力增加,可能使部分人出现紧张不安、心悸、注意力下降、失眠等症状。但焦虑障碍并没有明确的秋季高发规律,其发生与遗传、心理压力、神经递质及应激系统调节等多种因素有关。
肠道菌群可能通过肠-脑轴,与下丘脑—垂体—肾上腺(HPA)轴、自主神经系统及神经活性代谢物相互作用,参与机体的压力反应。
Li等对60名广泛性焦虑障碍患者和30名健康人进行多组学分析,发现患者肠道中大肠杆菌—志贺菌属(Escherichia-Shigella)增加,而罗斯氏菌属(Roseburia)、双歧杆菌属及部分普雷沃氏菌属减少。
同时,患者血浆中皮质醇、谷氨酸水平升高,γ-氨基丁酸(GABA)及血清素水平降低,提示肠道微生态变化可能与应激激素及神经活性物质代谢异常相关。
编辑
2025年另一项纳入24篇研究的系统综述发现,焦虑人群肠道中毛螺菌属(Lachnospira)、粪杆菌属(Faecalibacterium)、丁酸球菌属(Butyricicoccus)等相对减少,而肠杆菌科(Enterobacteriaceae)及梭杆菌属(Fusobacterium)相关菌群增多,但不同研究结果并不完全一致。
肠道屏障及微生物代谢功能异常可能改变炎症信号,影响HPA轴对压力的反应,使皮质醇分泌和自主神经活动发生变化。 同时,GABA和谷氨酸分别参与抑制性和兴奋性神经信号调节,其代谢异常可能与焦虑相关的神经兴奋性变化存在联系。
扩展阅读:
焦虑时代,肠道为何可能成为情绪调节的新入口
你的焦虑可能与食品添加剂有关,警惕食品添加剂引起的微生物群变化
失眠:粪杆菌和毛螺菌减少,微生物代谢影响睡眠调节
秋季白昼缩短、日照时间变化,可能影响人体昼夜节律。对于作息不规律或长期处于压力状态的人群,生物钟与睡眠需求之间的协调可能受到影响,出现入睡困难、夜间易醒、凌晨醒、睡眠浅和白天疲惫等症状。
睡眠不仅受褪黑素、腺苷及神经系统调节,还可能与肠道微生物产生的代谢物有关。
一项荟萃分析纳入14项研究、共9036人,发现失眠患者肠道中粪杆菌属、毛螺菌属减少,而布劳特氏菌属(Blautia)及Eubacterium hallii增加,同时伴随部分炎症及代谢指标变化。
Lin等多组学研究,发现毛螺菌属与血清腺苷水平及总睡眠时间呈正相关,而粪球菌属(Coprococcus)与血清苯酚、苯酚硫酸酯水平呈负相关。其中,苯酚及苯酚硫酸酯水平越高,部分失眠严重程度评分也越高。
影响睡眠的微生物群-肠道-大脑轴交流模式
编辑
Sen P, et al.,Trends Mol Med. 2021
腺苷是参与睡眠压力调节的重要信号分子;色氨酸代谢与褪黑素生成、昼夜节律也存在联系。肠道菌群可能通过影响代谢产物、免疫炎症及应激信号,间接参与睡眠调节。
睡眠节律紊乱也可能反过来改变肠道菌群组成及代谢功能,形成双向影响。
不过,血液腺苷水平与睡眠时间相关,并不能证明肠道菌群通过改变脑内腺苷直接导致失眠。2026年另一项整合468人的跨队列分析还观察到失眠者多样性升高,提示不同人群的菌群特征并不完全一致。
扩展阅读:
深度解析 | 睡眠健康与肠道健康之间的双向联系
肠道菌群与睡眠:双向调节
睡不着?别只怪压力!你的肠道菌群可能在作乱,中草药来修复
1. 滋阴润燥、以粮养菌:激活短链脂肪酸防线
针对问题
过敏性鼻炎、哮喘、特应性皮炎/湿疹、便秘。
菌群机制
秋季燥邪伤津,易致产短链脂肪酸(SCFA)菌群(如罗斯氏菌、伴生粪球菌、普拉梭菌)相对不足,削弱肠黏膜与皮肤气道屏障,并降低Treg免疫耐受,诱发Th2/Th17过度炎症。
当季饮食底物
可溶性膳食纤维与抗性淀粉:秋季根茎与谷物成熟,多选用山药、莲藕、百合、银耳、南瓜、芋头及燕麦、杂粮粥。不仅滋阴润肺,更为产丁酸菌提供丰富发酵底物,促进丁酸生成,修复“肠-肺”、“肠-皮”黏膜轴。
坚果润燥
适量补充核桃、黑芝麻、松子,富含不饱和脂肪酸与植物多酚,促进胆汁酸代谢协调,润滑肠道改善便秘。
2. 食疗药膳与本草配伍:精准重塑微生态平衡
针对问题
过敏体质、虚弱湿热、消化不良。
推荐药膳
沙参麦冬百合银耳羹:滋阴清肺、增液润肠,为双歧杆菌等益生菌提供黏多糖底物。
四神汤(山药、莲子、芡实、茯苓)
健脾渗湿,利于改善肠壁微循环,抑制革兰氏阴性条件致病菌及脂多糖(LPS)移位。
适宜中草药代茶饮
太子参、黄芪搭配麦冬,益气养阴固表;咽干鼻痒者可加桔梗、辛夷、甘草;肠燥者可泡服决明子配郁李仁。
3. 调控“肠-脑-轴”与光照节律:平复秋冬情绪与失眠
针对问题
秋季抑郁(季节性情感障碍)、焦虑、入睡困难。
菌群机制
日照缩短扰乱褪黑素与血清素分泌;产丁酸菌减少易促使色氨酸转向神经毒性的犬尿氨酸通路,诱发神经低度炎症。
干预方式
营养补充:食用香蕉、小米、豆类、禽肉等富含色氨酸与B族维生素的食物,促进脑-肠5-HT合成。
采光与作息
遵循“早卧早起,与鸡俱兴”。早晨安排30分钟户外快走,充足晨光能同步生物钟,间接稳定肠道微生物昼夜节律;晚间避免蓝光,睡前可用温水配合酸枣仁、百合茶安神。
4. 动静适度,护温养气:顺应秋季收敛节律
针对问题
内脏敏感性增高、肠易激综合征(IBS)、体虚乏力。
起居与运动
秋主收敛,运动宜选择八段锦、太极、慢跑或瑜伽,避免大汗淋漓耗伤津液;注意腹部及颈部保暖,防止冷刺激诱发肠道痉挛与肥大细胞组胺释放。
总结
秋季养生核心在于顺应时序,以秋收之物(根茎、多糖、坚果)喂养有益菌群,通过提升短链脂肪酸水平稳固屏障、平抑过敏、滋润肠道、舒缓神经,实现从肠道微生态到全身内外兼治的健康平衡。
注:这篇文章仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
主要参考文献
Watts AM, West NP, Zhang P, Smith PK, Cripps AW, Cox AJ. The Gut Microbiome of Adults with Allergic Rhinitis Is Characterised by Reduced Diversity and an Altered Abundance of Key Microbial Taxa Compared to Controls. Int Arch Allergy Immunol. 2021;182(2):94-105.
Liu K, Cai Y, Song K, Yuan R, Zou J. Clarifying the effect of gut microbiota on allergic conjunctivitis risk is instrumental for predictive, preventive, and personalized medicine: a Mendelian randomization analysis. EPMA J. 2023 May 22;14(2):235-248.
Miyachi H, Shibata R, Javornik Cregeen SJ, Surathu A, Sijaric M, Espinola JA, Sullivan AF, Mansbach JM, Camargo CA Jr, Zhu Z. Interactions between host genetics and gut microbiome influence susceptibility to childhood asthma and lung function. J Allergy Clin Immunol. 2026 Apr;157(4):868-878.
Díez-Madueño K, Montero I, Fernández-Gosende M, Martínez-Álvarez N, Hidalgo-Cantabrana C, de la Cueva Dobao P, Coto-Segura P. Compositional and Functional Profile of Gut Microbiota in a Cohort of Adult Spanish Patients with Atopic Dermatitis Using Metagenomics: A Cross-Sectional Study. Dermatitis. 2025 Jul-Aug;36(4):358-364.
Zhu L, Jian X, Zhou B, Liu R, Muñoz M, Sun W, Xie L, Chen X, Peng C, Maurer M, Li J. Gut microbiota facilitate chronic spontaneous urticaria. Nat Commun. 2024 Jan 2;15(1):112.
Podder I, Pesqué D, Carrón N, González Torres PI, Pujol RM, Giménez-Arnau AM. Gut microbial alteration in chronic spontaneous urticaria unresponsive to second generation antihistamines and its correlation with disease characteristics- a cross-sectional case-control study. Clin Transl Allergy. 2025 Jan;15(1):e70027.
Xiao Y, Wang Y, Tong B, Gu Y, Zhou X, Zhu N, Xu X, Yin X, Kou Y, Tan Y, Wang J, Li W. Eubacterium rectale is a potential marker of altered gut microbiota in psoriasis and psoriatic arthritis. Microbiol Spectr. 2024 Apr 2;12(4):e0115423.
Han K, Kuo B, Khalili H, Staller K. Metagenomics Analysis Reveals Unique Gut Microbiota Signature of Slow-Transit Constipation. Clin Transl Gastroenterol. 2024 Oct 1;15(10):e1.
Li J, Ghosh TS, Arendt E, Shanahan F, O’Toole PW. Cross-Cohort Gut Microbiome Signatures of Irritable Bowel Syndrome Presentation and Treatment. Adv Sci (Weinh). 2024 Nov;11(41):e2308313.
Zhan K, Wu H, Xu Y, Rao K, Zheng H, Qin S, Yang Y, Jia R, Chen W, Huang S. The function of the gut microbiota-bile acid-TGR5 axis in diarrhea-predominant irritable bowel syndrome. mSystems. 2024 Mar 19;9(3):e0129923.
Wang ZT, Tan WT, Huang JL, Zhang PF, Li Q, Wang MM, Meng MM, Su H, Guo CM, Liu H. Correlation Between Gastroesophageal Reflux Disease and Small Intestinal Bacterial Overgrowth: Analysis of Intestinal Microbiome and Metabolic Characteristics. J Inflamm Res. 2025 Jan 4;18:33-51.
Zhang Q, Zhao W, Yun Y, Ma T, An H, Fan N, Wang J, Wang Z, Yang F. Multiomics analysis reveals aberrant tryptophan-kynurenine metabolism and immunity linked gut microbiota with cognitive impairment in major depressive disorder. J Affect Disord. 2025 Mar 15;373:273-283.
Li Y, Dai J, Wang M, Yan C, Xiu M, Qu M. Alterations in gut microbiota and plasma metabolites in patients with generalized anxiety disorder: a multi-omics study. Int J Neurosci. 2026 Mar;136(3):268-285.
Lin W, Yang Y, Zhu Y, Pan R, Liu C, Pan J. Linking Gut Microbiota, Oral Microbiota, and Serum Metabolites in Insomnia Disorder: A Preliminary Study. Nat Sci Sleep. 2024 Dec 7;16:1959-1972.