-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
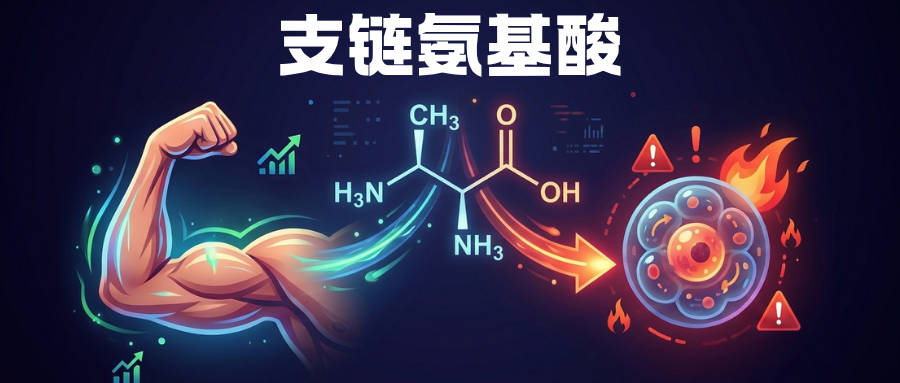
健身房里,很多人把支链氨基酸(BCAA)当作训练前后来一勺的”肌肉饮料”;但是越来越多研究结果指向BCAA是糖尿病、脂肪肝、心血管事件的代谢预警信号。
同一种物质,为什么既被当作营养补剂追捧,又被当作疾病风险标记信号?
答案可能藏在”量”与”去向”里。
支链氨基酸(BCAA)指的是亮氨酸(Leucine,Leu)、异亮氨酸(Isoleucine,Ile)和缬氨酸(Valine,Val)这三种分子结构上带有“支链”的氨基酸。它们是人体必需氨基酸必须依赖食物摄入;它们约占人体摄入并整合进蛋白质的氨基酸总量的20%左右。
适量、通畅地被肌肉氧化利用时,它们是维持肌肉、调节能量、合成神经递质的”好帮手”;而当代谢通道被堵住、血浆浓度长期升高时,它们及其下游产物可能会反过来损伤胰岛素信号、诱发炎症和脂毒性。
目前越来越多的研究发现,血液里 BCAA 高不高,除了与饮食摄入以及肌肉、肝脏和脂肪代谢有关,还与肠道及肠道菌群密切相关。一部分肠道细菌能合成BCAA,另一些细菌则参与分解、消耗它们。
当菌群失衡导致天平向”合成”一侧倾斜时,即使吃得不算多,循环 BCAA 也可能悄悄升高。理解这条”肌肉—肝脏—脂肪—肠道菌群”的完整链路,才能真正读懂BCAA 对健康意味着什么,也才谈得上“怎么吃、怎么练、怎么查”。
下面我们从最基础的概念出发,逐层拆开这套系统。
支链氨基酸(BCAA)之所以被单独拎出来讲,是因为它们身上有两个鲜明的共同点。
▸ 结构上的”支链”:一条侧链决定了一整类代谢
普通氨基酸的侧链多是直链,而亮氨酸、异亮氨酸、缬氨酸的侧链是带分支的碳链——这正是”支链氨基酸”名字的由来。
别看只是多了一个”叉”,这个分支结构让它们在体内的分解必须走一套专属的酶系统。结构的独特性,直接决定了它们代谢命运的独特性。
▸ 必需,而且”用量大”
三种支链氨基酸(BCAA)都是人体无法自行合成的必需氨基酸。在人类膳食中,总蛋白摄入的大约 20%来自 BCAA。也就是说,只要吃的是正常比例的肉、蛋、奶、豆、鱼,每天摄入的 BCAA 量通常并不小。它们进入体内后主要有三个去向:
用于蛋白质合成:成为肌肉、器官蛋白;
进入线粒体氧化供能:在能量不足时贡献碳骨架,最终进入三羧酸(TCA)循环;
作为氮供体:为大脑合成谷氨酸、γ-氨基丁酸(GABA)等神经递质,参与非必需氨基酸的合成。
▸ 三重身份:营养、信号与”生物标志”
BCAA 区别于其它氨基酸的地方,在于它同时扮演三种角色:它既是营养底物(造蛋白、供能),又是信号分子(尤其亮氨酸,是激活 mTORC1 通路的强效”开关”,能启动肌肉蛋白合成),还是一个可被血液检测捕捉的生物标志物。
近十多年来,大量人群研究把”空腹血浆 BCAA 水平升高”与肥胖、胰岛素抵抗、2 型糖尿病、非酒精性脂肪肝乃至未来心血管事件的风险联系了起来。
总之,它们既是造肌肉的原料,也是激活代谢信号的信使——用得好是燃料,堆积起来就是风险提示。
要理解 BCAA 为什么会累积、又为什么能伤身,必须先看懂它们被分解的这条流水线。
与大多数氨基酸主要在肝脏氧化不同,BCAA 的分解主要发生在肝外组织,原因很关键:肝细胞内的支链氨基酸转氨酶(BCAT)活性很低,因此肝脏并不是分解 BCAA 的主力;真正干活的是骨骼肌、脂肪组织、肾脏、胰腺、心脏等器官。
这也是为什么一次高蛋白大餐后,血液里的 BCAA 会明显、且持续地升高——它们要运输到肌肉和脂肪里才能被处理。
1. 转氨基——BCAT把BCAA变成BCKA
分解的第一步,是由支链氨基酸转氨酶(BCAT)催化的可逆反应:BCAA 被转去氨基,变成对应的支链酮酸(Branched-Chain α-Keto Acids,BCKA)
亮氨酸→α-酮异己酸;
异亮氨酸→α-酮-β-甲基戊酸;
缬氨酸→α-酮异戊酸。
其中 BCAT2 在骨骼肌中占主导。这一步释放出来的氮,可以被用来合成谷氨酸、丙氨酸、谷氨酰胺等,参与全身的氮转运。
2. 不可逆的”开关”——BCKDH 复合物
第二步是整个分解的限速步骤,也是不可逆的”卡口”:BCKA 由支链α-酮酸脱氢酶复合物(BCKDH)氧化脱羧,生成对应的酰基辅酶 A(acyl-CoA)和 NADH。这个复合物由 E1、E2、E3 三个亚基组成,其活性受到精密的”磷酸化开关”调控:
BCKDK(支链酮酸脱氢酶激酶):把 E1α 亚基第 293 位丝氨酸(Ser293)磷酸化,使复合物失活——相当于”踩刹车”;
PPM1K(蛋白磷酸酶 1K):把同一位置去磷酸化,使复合物激活——相当于”松刹车”。
当体内 BCAA/BCKA 比例升高时,PPM1K 介导的去磷酸化增强,BCKDH 被打开、加速分解;反之,当 BCAA 不足时,BCKDK 占上风,BCKDH 被关小,节约氨基酸。这个”刹车—油门”的平衡,是决定你血浆 BCAA 高低的核心分子开关。
3. 下游去向:进入 TCA 循环,或被”改道”去合成脂肪
BCKA 脱羧后生成的 acyl-CoA 继续被加工,最终产生乙酰辅酶 A(acetyl-CoA)和琥珀酰辅酶 A(succinyl-CoA),汇入三羧酸(TCA)循环彻底氧化放能。
这条通路在能量供应上贡献可观。但请注意一个隐藏的”岔路”:乙酰辅酶 A同时也是脂肪合成(脂质从头合成,DNL)的原料。当 BCAA 分解不畅、代谢通道拥堵时,这些碳骨架就可能被”改道”用于脂肪生成——这正是过量 BCAA 与脂肪堆积之间的一条重要联系。
•关键点:BCAA 分解”卡”在哪里,决定了它的危害面。卡在第一步/第二步(BCKA 堆积),会引起胰岛素抵抗与炎症;卡在更下游(氧化不全),则可能把碳流推向脂肪生成与活性氧(ROS)。这两个”堵点”是后文大量疾病的共同底层机制。
4. 全身BCAA分解的组织分工
研究者用小分子同位素(13C)追踪技术,第一次量化了小鼠全身 BCAA 的去向,结果非常直观:
▸ 肌肉量少的人共容易BCAA堆积
人体骨骼肌承担了大约六成的全身 BCAA 分解任务,脂肪组织约两成,肝脏只占一成左右。
这个分工能解释了为什么肌肉量少、久坐、肥胖、脂肪与肝脏代谢异常的人,更容易出现 BCAA 堆积:因为最重要的”处理车间”(肌肉)产能不足或”罢工”了。
研究还发现,糖尿病状态下,BCAA 氧化会从脂肪和肝脏”转移”到肌肉,是机体为适应代谢状态的一种代偿性重排。
接下来,在讨论”BCAA 有害还是有益“之前,先要看清它们在正常生理状态下的作用。作为必需氨基酸与信号分子,BCAA 参与了人体多个核心过程。
1. 肌肉:蛋白合成、抗分解与能量储备池
骨骼肌是消耗BCAA最多、也是其发挥作用的主要组织。BCAA,尤其是亮氨酸,可激活mTORC1信号通路,促使其磷酸化下游的S6K1和4E-BP1,进而促进肌肉蛋白合成、抑制分解,并增加肌纤维的尺寸与质量。
动物研究还发现,补充BCAA可促进线粒体生物合成,并提高抗衰老分子Sirt1的表达。这些作用构成了BCAA用于运动营养和老年肌少症干预的理论基础。
不过,促进合成也有两面性:适量激活有助于增肌、维持肌力;长期过度激活mTORC1,则可能干扰胰岛素信号(后文详述)。
2. 脂肪组织:参与脂肪细胞分化、产热与”燃脂”
脂肪组织是BCAA的第二大代谢器官。正常情况下,BCAA进入脂肪细胞后,可作为脂肪细胞分化的底物,并通过单甲基支链脂肪酸(mmBCFA)途径参与脂质从头合成。
编辑
棕色脂肪组织(BAT)也是BCAA氧化的第二大场所:受寒冷刺激时,它会借助新发现的转运体SLC25A44摄取血液中的BCAA,将其用作产热底物。这一发现表明,BCAA也能直接参与能量消耗。
3. 肝脏:合成白蛋白与葡萄糖的”原料供应商”
肝脏虽不是BCAA分解的主要场所,却会大量摄取BCAA用于蛋白质合成。BCAA是合成白蛋白的重要氮源,这一点已有实验支持。
因此,临床上会为肝硬化或肝功能不全患者使用BCAA制剂,以提供蛋白合成原料,同时避免加重肝脏的代谢负担。
4. 全身:能量供应、血糖调节与免疫、神经
BCAA 参与葡萄糖代谢的调节:它们可以通过抑制丙酮酸脱氢酶复合物等环节影响糖的氧化利用;在长时间运动或饥饿时,肌肉蛋白降解、BCAA 氧化增强,为全身供能。
编辑
此外,BCAA 作为氮供体参与免疫细胞的增殖与功能维持,还参与大脑横跨血脑屏障的“谷氨酸-谷氨酰胺循环”,为神经递质的合成提供底物。这一点在后面的神经系统疾病部分还会展开。
当 BCAA 不能被及时、顺畅地代谢掉,它们在血液里的浓度就会升高,并带来一系列连锁反应。大量人群研究已经反复观察到这一现象。
1. 与肥胖与胰岛素抵抗、2型糖尿病正相关
这是证据最充分、研究最深入的一条关联。多项研究显示,血浆 BCAA水平与肥胖、胰岛素抵抗、2 型糖尿病(T2D)存在稳定的正相关,且这种关联跨越不同种族人群。人群研究还发现:
膳食 BCAA 摄入量与血脂异常风险相关,膳食异亮氨酸摄入量与BMI正相关;
缬氨酸的分解中间产物 3-羟基异丁酸(3-HIB)水平,与 T2D 和胰岛素抵抗的发病率正相关,也与胰岛素水平和 HOMA-IR 正相关;
BCAA 分解通路相关基因(如 PPM1K、BCAT2、BCKDHA)的单核苷酸多态性(SNP),与更高的血清 BCAA 水平和更高的代谢病风险相关;
反过来,与胰岛素抵抗相关的基因变异,也强烈关联更高的循环 BCAA 水平。
更重要的是,BCAA不仅是疾病的“旁观者”或标志物,也可能是致病介质——这是近年研究认识的重要转变。机制上,升高的BCAA/BCKA可损害胰岛素信号、抑制脂肪生成、诱发炎症,并导致脂毒性,尤其影响肌肉和肝脏。
2. 与脂肪肝风险存在相关性
在非酒精性脂肪性肝病(现称代谢相关脂肪性肝病,MAFLD)中,循环 BCAA 与 BCKA 同样升高。BCKA 水平与肥胖/T2D、非酒精性脂肪性肝炎(NASH)相关。
研究提示,BCAA 可通过促进脂肪细胞脂解和抑制肝脏自噬,加重肥胖/糖尿病小鼠的肝脏损伤。此外,肥胖伴肝脂肪变性人群的肠道菌群,也表现出更强的BCAA 生物合成潜力。
3. 心血管疾病
BCAA 升高与心血管疾病(CVD)风险增加相关,包括前瞻性队列研究发现的关联。机制涉及脂毒性、血管内皮脂肪酸转运异常(如 3-HIB 促进血管脂肪酸转运)以及慢性炎症。
编辑
在心肌层面,BCAA 分解的缺陷与心脏胰岛素抵抗、心脏功能受损相关。
4. 糖尿病肾病与糖尿病并发症
糖尿病肾病(DMN)是糖尿病的重要微血管并发症。一项整合了临床、菌群分类、基因和代谢物分析的研究发现:与健康对照相比,DMN 患者粪便中缬氨酸、异亮氨酸、蛋氨酸等水平更高,且这六种代谢物与临床指标的随机森林分析显示,蛋氨酸和 BCAA 是区分 DMN 组与对照组最重要的特征之一(仅次于 eGFR 和蛋白尿)。
研究还发现,DMN 患者肠道中富集的若干菌种携带更多参与BCAA 和蛋氨酸生物合成的基因——这为”肠道菌群参与糖尿病肾病发病”提供了直接证据。
5. 神经系统疾病:脑卒中与帕金森病
BCAA 与神经系统的关系呈现出复杂性,值得单独说明。
▸ 缺血性脑卒中存在显著的 BCAA 累积
一项研究发现,缺血性脑卒中患者和缺血/再灌注(I/R)模型大鼠均存在显著的BCAA累积,且与肠道菌群失调和卒中进展密切相关。
研究进一步发现,瑞士乳杆菌(Lactobacillus helveticus)和短乳杆菌(Lactobacillus brevis)受卒中影响显著;定植这两种益生菌可减轻BCAA累积,并发挥神经保护作用。
机制上,BCAA累积会激活AKT/STAT3/NF-κB通路,加剧小胶质细胞介导的神经炎症。这些发现提示,菌群失调可能通过BCAA累积和神经炎症加重卒中,也显示了益生菌干预的潜力。
▸ 帕金森病患者BCAA水平降低
与其他疾病中的发现不同,帕金森病(PD)患者的BCAA和芳香族氨基酸(AAA,如酪氨酸)水平似乎降低。一项纳入106名患者和114名对照的研究发现,水平越低,往往与病程更长、MDS-UPDRS评分更高、左旋多巴剂量更大及疾病分期更重相关。这可能与患者能量消耗增加、胃肠功能障碍影响吸收,以及左旋多巴与BCAA竞争小肠立体特异性转运系统有关。
此外,患者肠道中参与BCAA合成的菌群基因(如ilvB、ilvC、ilvD、ilvN)减少,粪便BCAA浓度也随之降低。
▸ BCAA需要在一个合适的水平,过高过低都不好
卒中患者BCAA升高并伴有菌群失调,而帕金森病患者BCAA降低、菌群合成能力减弱。这表明,BCAA与神经健康并非越高或越低越好,维持适宜水平才是关键,也体现了BCAA兼具营养作用与稳态调节需求。
6. 癌症与恶病质:因组织而异
在肿瘤领域,BCAA 的角色更显微妙。一方面,在某些肿瘤发生过程中,BCAA 分解能力的丧失会增强 mTORC1 活性、促进肿瘤发展;另一方面,肿瘤微环境也可能争夺 BCAA 供给。
编辑
doi: 10.1038/s41392-023-01569-3
而在恶病质中,BCAA 又是维持肌肉蛋白合成、对抗肌肉流失的营养支持手段。这说明在癌症与消耗性疾病的营养支持中,BCAA 的使用需要“因时、因病、因人”地权衡,而非一刀切。
编辑
doi: 10.1038/s41392-023-01569-3
注:一个必须澄清的误区:”BCAA 升高 = 吃太多 BCAA”并不成立。在很多情况下,升高是因为身体处理 BCAA 的能力(而非摄入量)出了问题——这恰恰是代谢病的一个标志。所以,看到 BCAA 指标偏高,重点不是急着”戒肉”,而是排查背后的代谢与菌群状态。
要真正理解 BCAA 与健康的关联,就得知道在肥胖和糖尿病状态下,是哪些组织”掉链子”了。答案集中在三个核心代谢器官:脂肪组织、骨骼肌和肝脏。
▸ 脂肪组织:从BCAA代谢场所→炎症的来源
生理状态下,健康脂肪组织可高效处理BCAA:通过SLC1A5、SLC3A2/SLC7A5等转运体将其摄入脂肪细胞,并将部分碳骨架转化为参与脂质合成的单甲基支链脂肪酸(mmBCFA)。此外,BCAA分解通路与PPARγ相关的脂肪细胞分化密切相关,有助于维持脂肪组织功能。
▸ 肥胖和糖尿病患者脂肪组织处理BCAA改变
然而,肥胖和糖尿病会显著改变这一过程:
分解酶减少、抑制因子增加:BCKDHA、BCAT2 等促进 BCAA 分解的蛋白在脂肪组织中减少,而负向调控因子(BCKDK、Ser293 磷酸化的 BCKDHA)增加——BCAA 分解被显著抑制;
缺氧与纤维化:脂肪组织过度增生(肥大)会加剧局部缺氧,而缺氧会抑制 BCAA 分解、减少脂肪细胞对 BCAA 的摄取,并把 BCAA”改道”推向脂质生成;
炎症恶性循环:升高的 BCAA/BCKA 会促进脂肪组织中的巨噬细胞向促炎的 M1 型极化,分泌 TNF-α、IL-1β、MCP-1 等炎症因子;而炎症又反过来抑制 BCAA 分解。两者形成”越炎越堵、越堵越炎”的恶性循环;
影响产热:BCKA 还会通过乙酰化 PRDM16 等机制,抑制白色脂肪”米色化”——也就是削弱脂肪燃烧、增加能量储存。
编辑
还有一条值得关注的自分泌环路:脂肪细胞中转运体 SLC7A10 功能受阻时,会促使 BCAA 转向生成 3-HIB;而皮下脂肪 SLC7A10 表达与 BCAA 水平呈负相关。3-HIB 正是那个与胰岛素抵抗强相关的缬氨酸中间产物。
▸ 骨骼肌:BCAA代谢能力受损后果严重
骨骼肌承担约59%的全身BCAA分解,同时也是最大的葡萄糖摄取组织,经GLUT4摄取约70%的全身葡萄糖。因此,肌肉BCAA代谢异常可能产生广泛影响。
在2型糖尿病(T2D)的早期和晚期,肌肉中的BCAA及其分解产物BCKA均会升高,这可能与BCAA分解酶表达下降有关。此外,BCAA还可能通过两种机制损害胰岛素作用:
mTORC1 过度激活:亮氨酸持续、过量地激活肌肉 mTORC1,会通过负反馈磷酸化 IRS-1(胰岛素受体底物 1),削弱胰岛素信号;
BCKA 直接抑制摄取:BCKA(如亮氨酸的酮酸)会抑制 AKT 磷酸化,从而阻断胰岛素刺激的葡萄糖摄取。
编辑
当肌肉氧化磷酸化(OXPHOS)受损时,BCAA碳流可能偏离三羧酸循环,转而促进新生脂肪生成并增加活性氧产生。因此,肌肉既可清除BCAA,也可能因代谢功能受损而成为BCAA积累和胰岛素抵抗的主要部位;其作用取决于代谢状态和运动水平。
▸ 肝脏:从代谢底物储库到脂毒性与炎症反应的放大器
尽管肝脏仅承担约8%的BCAA分解,其对全身BCAA稳态仍具有重要影响。肥胖或糖尿病状态下,肝脏BCAA分解相关蛋白减少,负向调控因子增加。BCAA及BCKA升高可通过抑制肝脏自噬、促进脂肪组织脂解等途径,加剧脂质蓄积和肝损伤。
此外,组织间还存在复杂的代谢互作:例如,棕色脂肪中BCAA衍生氮合成受阻,可能导致肝脏氧化应激增加、胰岛素信号减弱。
总体而言,肥胖或糖尿病可引发脂肪组织缺氧与炎症,并降低肌肉和肝脏中BCAA分解酶的表达,削弱全身BCAA清除能力,导致血浆BCAA/BCKA升高。二者进而损害胰岛素信号、促进炎症和脂毒性,进一步加重组织功能障碍,形成持续的代谢恶性循环。
肌肉、肝脏和脂肪组织是BCAA代谢的主要调控者,而肠道菌群也是日益受到关注的重要参与者。肠道微生物既可合成也可利用BCAA,从而影响血液中的BCAA水平。
★ 肠道菌群:BCAA合成与代谢的重要参与者
多项研究证实,肠道细菌自身拥有一套完整的 BCAA 生物合成通路。人群研究提供了直接证据:
普雷沃氏菌(Prevotella copri)和普通拟杆菌(Bacteroides vulgatus)这两种具备 BCAA 合成能力的肠道细菌,在胰岛素抵抗者体内与循环 BCAA 水平正相关;
宏基因组分析显示,在胰岛素抵抗人群中,菌群中负责 BCAA”合成”的基因表达升高,而负责”转运”的基因表达下降;
在饮食诱导肥胖(HFD)和链脲佐菌素(STZ)诱导的糖尿病大鼠中,菌群中 BCAA 生物合成基因的丰度同样更高;
在肥胖伴肝脂肪变性女性中,肠道菌群也表现出更强的 BCAA 生物合成潜力。
这些证据提示,肠道菌群合成的BCAA可被肠道吸收并进入体循环,从而影响血浆BCAA水平。因此,即使膳食BCAA摄入不变,菌群组成变化也可能导致血浆BCAA波动。
▸ 菌群与宿主的”互相塑造”
▸ 菌群与BCAA存在双向调控
肠道菌群可通过合成、消耗和转化影响宿主BCAA水平;宿主的饮食、胆汁酸和免疫状态也会塑造菌群结构。
研究表明,BCAA还可影响肠道发育、营养转运和免疫功能,促进肠道健康;富含BCAA的混合物甚至可能逆转部分年龄相关的菌群变化。因此,补充或限制BCAA的效果可能因个体的代谢和菌群状态而异。
编辑
肠道菌群既能合成也能消耗BCAA。若菌群偏向合成(如P. copri、B. vulgatus增多或相关合成基因活跃),循环BCAA可能升高;若部分具有BCAA消耗能力的益生菌(如某些乳酸杆菌)减少,BCAA也可能更易累积。因此,调节菌群可能成为影响BCAA代谢的途径之一。
▸ “菌群—BCAA—疾病”三条主线
(1)胰岛素抵抗与糖尿病:菌群的 BCAA 合成能力升高,是胰岛素抵抗人群的一个特征性变化;反之,改善菌群有助于降低循环 BCAA、改善胰岛素敏感性。
(2)糖尿病肾病:DMN 患者肠道中富集的菌种携带更多 BCAA 合成基因,其粪便 BCAA与蛋氨酸水平也更高,且这些指标在区分患者与健康人时具有重要价值。这提示菌群调控的 BCAA 可能参与了糖尿病肾病的发病或进展。
(3)脑卒中:缺血性脑卒中患者与动物模型都出现BCAA 累积,并伴随菌群失调;下调的乳酸杆菌被认为是 BCAA 累积的重要风险因素,而补回这些菌能显著缓解 BCAA 累积并发挥神经保护作用。
▸ 肠道菌群影响BCAA代谢的五种机制
肠道菌群通过哪些具体且可干预的途径影响BCAA?以下梳理五种较明确的机制。
① 直接合成与消耗:调节BCAA供给
这是最直接的一条,部分菌(如P.copri、B.vulgatus)可合成并释放BCAA,经肠道吸收后进入血液;另一些菌(如部分乳酸杆菌和链球菌)则会消耗BCAA用于生长。因此,菌群的合成与消耗平衡可能影响循环BCAA的基线水平。
② 短链脂肪酸:菌群代谢的”下游信使”
菌群发酵膳食纤维产生的短链脂肪酸(乙酸、丙酸、丁酸),是菌群影响宿主代谢的核心介质。它们的作用包括:
丁酸是肠道上皮的主要能量来源,具有抗炎作用,并调节肠屏障;
丙酸促进饱腹感、抑制肝脏脂肪合成;
SCFA 还能刺激肠道内分泌细胞分泌 GLP-1,改善血糖调控。
菌群代谢产物与BCAA也会相互影响。例如,芳香族氨基酸代谢产物苯乙酸可增强肝细胞对BCAA的利用及脂质生成;菌群发酵产生的乙酸则可能通过调节肝脏代谢,减少肝脂肪堆积。
③ “肠—肝轴”:把肠道信号送进肝脏代谢
肠道来源的 BCAA、SCFA、次级胆汁酸等经门静脉首先抵达肝脏,直接影响肝脏的糖脂代谢与 BCAA 利用。肥胖人群肠道菌群更强的 BCAA 合成潜力,可能就是通过这条轴推高循环 BCAA、加重肝脂肪变性的。
④ “肠—脑轴”:BCAA 与神经炎症的连接线
肠道菌群通过代谢物、免疫信号和神经通路与大脑双向沟通。在脑卒中的研究中,菌群失调导致的 BCAA 累积,被认为通过激活 AKT/STAT3/NF-κB 通路加剧小胶质细胞神经炎症。
而 BCAA 本身也是大脑合成谷氨酸、GABA等神经递质的氮供体,参与”谷氨酸-谷氨酰胺循环”。菌群—BCAA—神经炎症/神经递质,构成了一条真实的肠脑通路。
⑤ 菌群是影响运动应答的关键因素之一
运动带来的代谢改善因人而异,“不应答者”比例为7%—69%。这种差异与肠道菌群及其代谢物有关:应答者短链脂肪酸和GABA合成增加、BCAA水平下降;不应答者则相反。这提示,运动结合菌群调节(如补充植物化学物)或有助于改善单靠运动效果不佳者的代谢状况。
但也需注意,在饮食诱导肥胖小鼠中,补充BCAA会抵消运动对胰岛素敏感性和内脏脂肪脂质生成的改善作用。因此,健身时同时大量补充BCAA未必有益。
读到这里,你可能会困惑:BCAA 一会儿是肌肉营养,一会儿又是疾病风险,到底该怎么看?科学界对这个问题也仍在争论,但已经能梳理出清晰的框架。
少一点更好”的证据(限制 BCAA):
限制膳食 BCAA 摄入,可改善血糖控制、减少脂肪量、改善脂肪组织线粒体功能,甚至延长小鼠寿命;在肥胖和糖尿病的人与动物中,BCAA 限制也带来代谢改善。
更有意思的是,一项更精细的研究指出,限制 BCAA 的代谢益处主要来自异亮氨酸和缬氨酸,而非亮氨酸,其机制部分通过激活肝脏分泌的成纤维细胞生长因子 21(FGF21)实现——FGF21 能提升能量消耗与胰岛素敏感性。
多一点也有用”的证据(补充 BCAA):
另一方面,亮氨酸补充被报道能增强胰岛素信号、促进线粒体生物合成、减少脂质堆积、降低体重与脂肪量。在老年肌少症、肝病、某些消耗状态中,BCAA 补充又确实有益。
怎么理解这种矛盾?四个关键变量
这些看似冲突的结论,其实取决于以下几个变量:
•个体底子(代谢状态):健康人、代谢病人、老年人、消耗状态患者的“最优 BCAA 摄入”并不相同;
•三种 BCAA 各有”个性”:亮氨酸、异亮氨酸、缬氨酸对 mTOR 的活性、下游代谢产物都不一样,不宜”一锅端”;例如代谢损害的”罪魁”更可能是异亮氨酸和缬氨酸;
•氨基酸之间的”配比”:BCAA 与色氨酸、苏氨酸等的比例,也会影响干预效果;
•干预方式与剂量:是”降低总摄入””单独补充亮氨酸”,还是”限制某一种”,不同的实验设计会得出不同结论。
目前较谨慎的共识是,BCAA并非绝对的“好”或“坏”,维持稳态更重要。代谢健康者通常通过正常饮食即可;有胰岛素抵抗、脂肪肝或糖尿病者,则应关注BCAA总量与组成(尤其异亮氨酸和缬氨酸)、促进其分解并维护肠道菌群,而非只纠结于补或不补。
限制BCAA的风险:避免走极端
必须强调,无节制地限制 BCAA 同样有代价:
BCAA 是维持肌肉量与肌力的关键,尤其对本身就面临肌肉流失的老年人;
大脑中约三分之一用于合成神经递质谷氨酸的氨基来自 BCAA,低血浆缬氨酸水平与更快的认知衰退相关;
BCAA 限制还可能削弱免疫功能、增加感染易感性。
因此,任何针对 BCAA 的干预都应当是个体化的,并密切监测疗效与潜在副作用。这也再次说明,”精准、平衡”而非”越多越好/越少越好”才是正确思路。
本文的重点是把前述机制转化为明天就能实践的行动。以下建议依据现有较明确且安全的证据;涉及疾病诊断或治疗时,请咨询专业医生。
哪些人应该特别关注自己的BCAA状态?
以下人群值得留意循环 BCAA 相关指标与代谢状态:
超重/肥胖,尤其腹型肥胖的人;
已诊断胰岛素抵抗、糖尿病前期、2 型糖尿病的人;
有脂肪肝(NAFLD/MAFLD)的人;
有代谢综合征、心血管风险的人;
久坐、肌肉量偏少的人;
长期高蛋白饮食、或长期大剂量服用 BCAA 补剂的健身人群(需要评估是否有必要)。
关于”检测”:能查什么,别过度解读
在临床与研究中,可能涉及的相关指标包括:
血液氨基酸/代谢组学:血浆 BCAA(亮氨酸、异亮氨酸、缬氨酸)、BCKA、3-HIB 等;
糖代谢指标:空腹血糖、胰岛素、HOMA-IR、HbA1c;
肝胆与血脂:肝功能、肝脏超声/脂肪定量、血脂谱;
菌群检测:宏基因组/16S 测序,可评估菌群中与 BCAA 合成相关的基因与菌属(如 Prevotella、Bacteroides 等)。
需注意,BCAA代谢组学和菌群合成基因检测目前主要用于研究,并非常规体检项目。即使检测,也应由专业人士结合血糖、胰岛素和肝脏影像等综合评估,切勿凭单项结果自行判断或用药。
▸ 饮食层面:吃对结构,而不是简单”多吃/少吃蛋白”
饮食上可以这样做:
蛋白”够用即可”,不长期过量:一般健康成人按体重摄入适量优质蛋白(如约 1.0 g/kg/天上下,具体因人而异),不必为了”养生”或”增肌”长期超量摄入;已有胰岛素抵抗、脂肪肝的人尤其要注意避免长期高 BCAA 负荷;
蛋白质来源多样化:在肉、蛋、奶、鱼、豆、坚果之间轮换,避免单一来源长期过量;
大幅提高膳食纤维:全谷物、豆类、蔬菜、水果、菌菇、海藻——这是给产 SCFA 有益菌的”口粮”,也是调节菌群最有力的日常手段;
多吃富含多酚/黄酮的植物性食物:深色蔬果、柑橘、茶、桑叶、海藻等,对应 9.3 节中多种植物化学物的正向证据;
控制超加工食品与添加糖:它们不利于健康菌群与代谢,间接恶化 BCAA 稳态;
不必”谈肉色变”:BCAA 是必需营养,正常吃是必须的,重点是总量与结构,而非完全杜绝。
▸ 运动层面:激活肌肉代谢功能
有氧 + 抗阻结合:有氧运动激活 BCKDH、促进 BCAA 氧化,抗阻训练维持肌肉量与胰岛素敏感性;
规律至上:把运动当作”开启 BCAA 分解通路”的日常开关,而非偶尔突击;
运动前后慎补 BCAA:文献提示运动的同时补充 BCAA 可能抵消运动改善胰岛素敏感性的收益,对以代谢改善为目标的人尤其要注意。
▸ 菌群层面:把”合成型”扳回”平衡型”
膳食纤维与多样化的植物性食物是根本(同上);
发酵食品(无糖酸奶、开菲尔、发酵豆制品等)有助于丰富菌群;
谨慎对待益生菌:文献提到某些乳酸杆菌(如 L. helveticus、L. brevis)在卒中模型中能降低 BCAA 累积、发挥保护作用,但这类结论多来自动物模型,具体菌株、剂量与适用人群需循证,不建议自行长期大量服用”补 BCAA”或”降 BCAA”的益生菌;
慎用抗生素与不必要的药物:菌群一旦被破坏,恢复需要时间;
体重管理:减重本身就能改善脂肪组织缺氧与炎症、恢复 BCAA 分解能力。
▸ 医疗层面:把”靶向 BCAA”交给专业判断
激活 BCAA 分解的药物(如 BT2、苯丁酸钠 NaPB、部分具有 BDK 抑制作用的药物)已进入临床研究,部分显示出改善胰岛素敏感性的潜力,但仍需更大规模的人体试验验证。这些属于医生处方与研究范畴,绝不可自行尝试。
三条”最小可执行”原则:①蛋白够用不多吃,来源多样化;②纤维与植物性食物拉满,把菌群养好;③规律运动,让肌肉重新成为 BCAA 的”清道夫”,且运动时别盲目补 BCAA。
注:本文基于公开发表的科研文献进行科普解读,仅作交流参考,不作为诊断及医疗依据。个体饮食调整,请结合自身情况并咨询专业人员。
主要参考文献
Mansoori S, Ho MY, Ng KK, Cheng KKY. Branched-chain amino acid metabolism: Pathophysiologicalmechanism and therapeutic implication. Obesity Reviews. 2025;26(2):e13856.
Bifari F, Ruocco C, Decimo I, Fumagalli G, Valerio A, Nisoli E. Amino acid supplements and metabolicnealth: a potential interplay between intestinal microbiota and systems control. Genes & Nutrition.2017:12:27.
Bo T, Fujii J. Primary Roles of Branched Chain Amino Acids (BCAAs) and Their Metabolism in
Physiology and Metabolic Disorders. Molecules. 2025;30(1):56.
Iwao M, Gotoh K, Arakawa M, et al. Supplementation of branched-chain amino acids decreases fataccumulation in the liver through intestinal microbiota-mediated production of acetic acid. ScientificReports. 2020;10:18768.
Shen J, Guo H, Liu S, et al. Aberrant branched-chain amino acid accumulation along the microbiota-gut-brain axis: a new potential target for ischemic stroke. British Journal of Pharmacology.
2023;180(3):347-368.
Zhang Y, et al. Alterations of plasma branched-chain and aromatic amino acids in patients with
Parkinson’s disease and their association with gut microbiota. npj Parkinson’s Disease. 2022;8:48.
Kim JE, Nam H, et al. Gut Microbial Genes and Metabolism for Methionine and Branched-Chain
Amino Acids in Diabetic Nephropathy. Microbiology Spectrum. 2023;11(2):e02344-22.
Nie C, He T, Zhang W, Zhang G, Ma X. Branched Chain Amino Acids: Beyond Nutrition Metabolism.
International Journal of Molecular Sciences. 2018;19(4):954.