-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
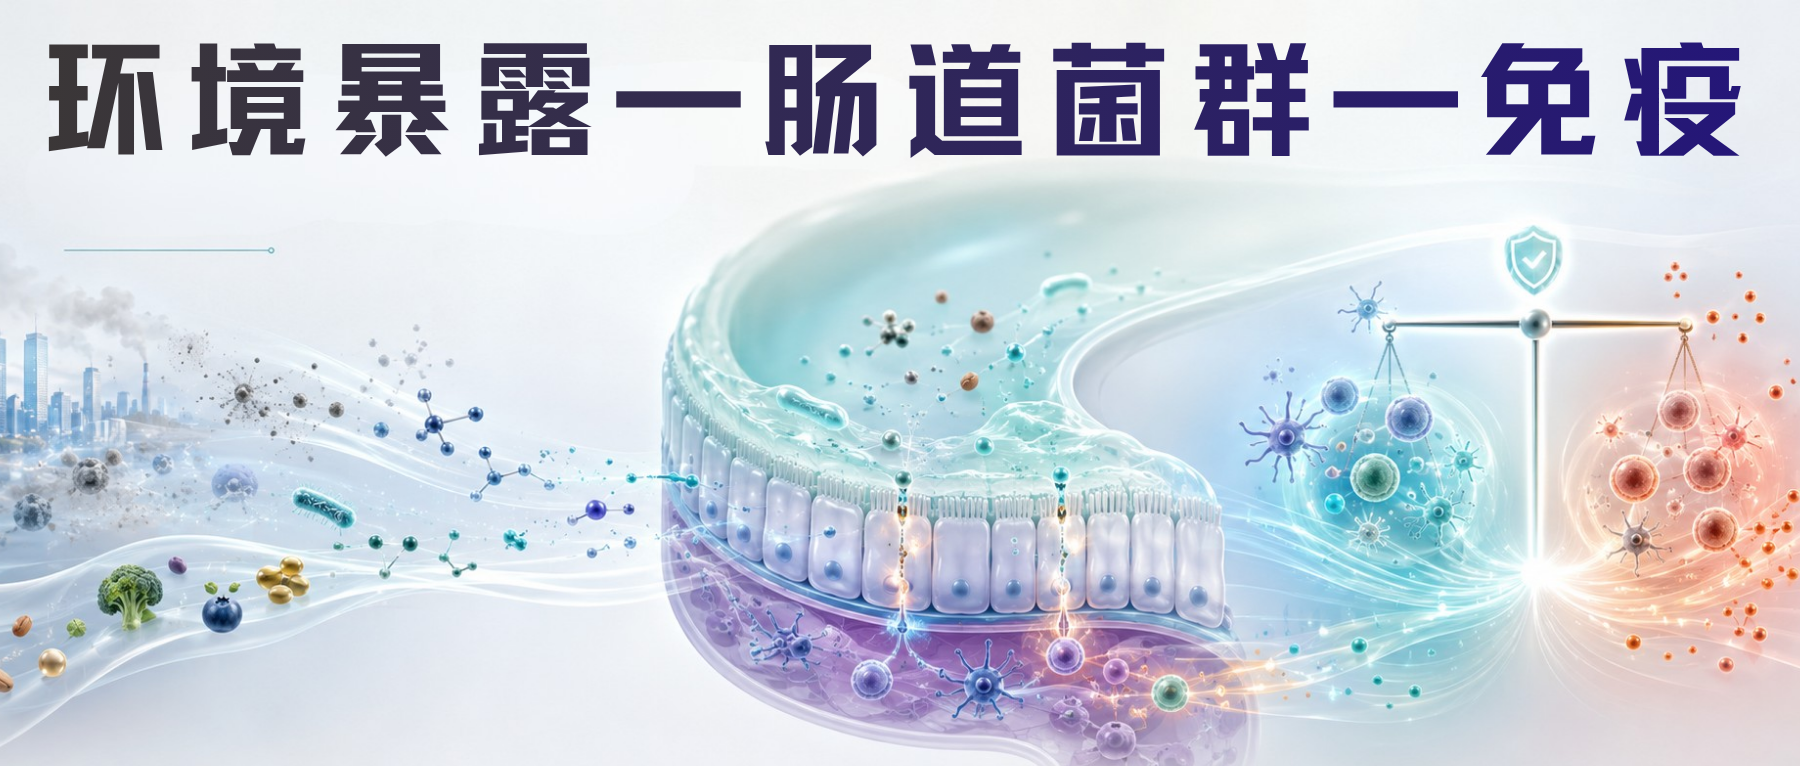
早高峰车流,空气中的细颗粒物;食物和饮水中可能存在的微量环境化学物;塑料在环境中不断降解形成的微塑料;农业生产中使用的农药,以及某些能够长期残留、蓄积的重金属……
这些东西离我们的生活并不遥远。但大多数时候,我们并不会特别意识到它们。
环境暴露往往不像一次感染那样,会让人突然发烧,也不像食物中毒那样,几个小时后就能明确感受到身体的变化。很多暴露的剂量很低,也没有什么特别感觉。
但如果,把时间从一天拉长到十年、二十年,甚至一生呢?它们会不会在身体里留下长期的生物学痕迹?
这个问题在自身免疫性疾病中尤其值得关注。流行病学数据表明,过去几十年,自身免疫性疾病的患病负担不断增加,但人的基因不可能在如此短的时间里发生同等程度的变化;双胞胎研究也提示,即使遗传背景非常接近,一个人最终是否发生系统性红斑狼疮、类风湿关节炎等疾病,仍然存在明显差异。
于是,研究的视线开始更多地转向基因之外:空气、饮食、化学物、生活方式,以及这些因素在一生中的累积影响。
这正是“暴露组(Exposome)”描述的东西。
本文我们看看这些外界因素,是如何被身体感知到,又可能怎样经过肠道微生态和免疫系统,一步步影响长期健康。理解这些,有助于寻找稳态发生偏移之前可能被识别和干预的环节。
我们每天都在暴露,只是很少意识到。
2005年,流行病学家 Christopher Wild 提出了一个概念:Exposome,暴露组。
如果说基因组(genome),描述的是一个人与生俱来的遗传信息,那么暴露组描述的,则是一个人从生命早期开始,一生经历的环境暴露总和。
这里的“环境”,比我们平时理解的要宽泛得多。
编辑
环境当然包括空气、水、气候、污染物;也包括饮食、吸烟、运动、职业环境等生活方式因素。
进一步往身体内部看,氧化应激、体内化学环境以及微生物群,也可以被看作暴露在人体内部留下的一部分生物学响应。
过去研究环境因素时,我们可能采用一对一的思路:
但真实生活显然不是这样。
一个生活在城市里的人,可能同时接触交通污染、不同来源的饮食成分、食品加工过程中使用的添加剂、环境中的微塑料和多种低浓度化学物质。而且这种暴露并不是只发生一天。它可能持续很多年。
编辑
因此,暴露组研究开始从单一因素,转向长期、低剂量、多因素共同暴露。
而要理解这些外界因素如何真正进入人体的生理网络,肠道是一个很重要的交汇点。
这里既直接面对大量外来物质,也聚集着微生物、代谢物、上皮屏障和大量免疫细胞。环境与人体的许多复杂互动,就发生在这里。
提到 PM2.5,我们首先想到的往往是肺。
但空气中的颗粒物进入呼吸道后,并不一定都停留在那里。
PM2.5,也会随着吞咽进入肠道
气道表面的黏液会黏住一部分颗粒,再由纤毛不断向咽部清除。这个过程每天都在发生,而其中一部分颗粒最终会随着吞咽进入消化道。
那么,这些颗粒进入肠道以后,会留下什么影响?
研究者已经观察到一些微生态层面的变化。
编辑
一项研究指出,在交通污染暴露较高的地区,人群肠道中的 Faecalibacterium prausnitzii 、Eubacterium rectale 有所减少。
注:这两类菌都是重要的产丁酸菌。丁酸水平的变化可能进一步影响结肠上皮能量代谢、紧密连接稳定性以及 Treg 相关的免疫调节。
研究提示,PM2.5 暴露可促进 ZO-1、Occludin 等紧密连接蛋白的降解,削弱肠上皮屏障完整性,并增加 LPS 等微生物来源成分跨越肠屏障的机会。
与此同时,PM2.5 还增加肠腔内活性氧(ROS)的产生,形成氧化应激。对于 Faecalibacterium prausnitzii、Eubacterium rectale 这类严格厌氧菌来说,氧化环境本身就不利于其生存;空气污染中的硫氧化物、氮氧化物还可能改变局部 pH,为部分耐受性更强的微生物创造不同的生态条件。
相比通过呼吸道间接进入肠道的颗粒物,我们日常生活中还有一些环境暴露,本身就是经口进入消化道的。
微塑料、农药、重金属,就是其中几类典型代表。
微塑料:先受到影响的,可能是黏液屏障
微塑料先改变黏液层和微生物生态位
微塑料进入肠道后,首先接触到的并不是上皮细胞,而是覆盖在其表面的黏液层。
动物研究显示,聚苯乙烯和聚乙烯微塑料暴露可造成肠道黏液层损伤,并抑制 MUC2 的表达。MUC2 是结肠黏液层最主要的黏蛋白之一,一旦其生成减少,原本用于隔开肠腔微生物和上皮细胞的物理距离也会随之缩短。
黏液层并不是简单的一层保护膜,它本身就是肠道微生态空间结构的一部分。像Akkermansia 这样的黏液相关菌,就生活在这一特殊生态位中。
研究表明,微塑料暴露伴随着 Akkermansia 减少、黏液层变薄,以及微生物与上皮直接接触增加。
而纳米塑料的问题还多了一层。
更小的纳米塑料进一步越过屏障,牵动局部免疫
由于颗粒尺寸更小,它们不仅可能穿过黏液层,还可以吸附其他环境污染物和微生物。有研究称之为:特洛伊木马效应。
BPA、重金属甚至附着在颗粒表面的细菌,都可能借助纳米塑料进一步进入肠道深层组织。
研究还发现,微塑料颗粒可在派尔集合淋巴结(Peyer’s patches)中聚集,并影响树突状细胞的抗原呈递功能,进一步增强 Th1 和 Th17 相关免疫反应。
也就是说,微塑料可能同时改变黏液层结构、微生物空间分布以及局部免疫识别环境。
农药:对肠道微生物形成选择压力
农药的作用方式又不太一样。
草甘膦可能改变菌群中的竞争关系
以草甘膦为例,它的主要作用靶点是植物中的莽草酸途径(shikimate pathway)。人体细胞没有这条代谢通路,但部分肠道微生物有。
这意味着,草甘膦进入肠道后,并不是对所有微生物产生同样的影响,而可能根据不同菌种对莽草酸途径的依赖程度,形成一种生态上的选择压力。
研究显示,草甘膦暴露与 Lactobacillus、Bifidobacterium 等减少有关,而部分对这一通路依赖较低或耐受性更强的 Clostridium、Salmonella 则可能获得相对生长优势。
这样的变化随后会反映到代谢层面。研究提示,草甘膦相关的菌群变化可伴随短链脂肪酸,尤其是产丁酸下降。SCFA 供应减少后,对 Foxp3+ Treg 分化和免疫耐受的支持也可能减弱。
注:这一部分需要谨慎。研究人员同时指出,很多实验中要达到明显菌群改变,使用的草甘膦浓度远高于普通人真实膳食暴露水平。
表1 暴露组分对肠道菌群和免疫系统的调节作用
编辑
doi: 10.1016/j.fct.2026.116331
重金属:影响微生物功能基因和生物转化能力
铅、镉、砷等重金属具有明显的生物蓄积特性。长期暴露下,它们的影响并不只停留在宿主细胞,也可能深入到肠道微生物的基因表达和代谢活动。
从菌群组成,到耐药基因组的重塑
研究显示,镉和铅暴露可促进肠道细菌中抗生素耐药基因的传播,也就是影响微生物群落的耐药基因组。这种传播可以通过细菌之间的水平基因转移发生。
这意味着,环境暴露带来的选择压力,可能进一步改变整个肠道微生物群携带的功能基因(包括它们具备怎样的耐受能力、携带哪些功能基因,以及这些基因如何在群落内部传播)。
微生物,也参与决定砷在体内如何被转化
动物研究显示,砷暴露可以损害肠道菌群对砷的生物转化能力,并导致包括单甲基砷酸在内的毒性代谢物积累,进一步加重氧化应激和系统性炎症。
关于重金属和肠道菌群,谷禾在之前的文章中有过更多阐述,详见:
因此,在某些环境化学物的暴露中,肠道菌群既可能是被影响的一方,也可能反过来参与决定这些物质最终形成怎样的代谢产物,以及宿主实际面对怎样的生物学暴露。
这也是为什么,当我们讨论环境因素与健康的关系时,仅仅测量外界暴露浓度往往还不够。进入人体生理系统的,已经不是最初的那个化学物,而是经过微生物和宿主共同代谢之后形成的一整套新的分子环境。
但这些发生在肠道里的变化,并不会一直停留在肠腔内部。
当代谢环境和屏障状态同时发生变化,一些原本被限制在肠腔中的微生物信号,就有机会进一步进入宿主的免疫视野。
食品乳化剂、微塑料和草甘膦等暴露可能与 Zonulin 介导的肠道通透性调节有关。Zonulin 是参与调节细胞间紧密连接的蛋白;相关信号可激活 EGFR(表皮生长因子受体)通路,使紧密连接蛋白与细胞骨架之间的连接发生改变,细胞间隙随之扩大。
原本主要被限制在肠腔中的细菌抗原、LPS(脂多糖)、肽聚糖以及部分未完全消化的食物蛋白(例如,麸质-醇溶蛋白),都可能获得更多机会穿过细胞之间的通路,进入肠黏膜固有层。
其中最典型的一类信号,就是 LPS。
LPS 原本是革兰阴性菌外膜的组成成分。在肠道屏障完整时,它主要被限制在肠腔内;但当屏障通透性增加,LPS 等微生物来源成分就更有机会接触黏膜免疫细胞,甚至进入循环。
更多关于LPS 可以看谷禾之前详细写过的文章:
LPS 一旦被识别,炎症通路就会启动
LPS 是革兰阴性菌外膜的重要组成成分。对于免疫系统来说,它并不是一个普通的细菌碎片,而是一类高度明确的微生物存在信号。
巨噬细胞、树突状细胞等先天免疫细胞表面的 TLR4可以识别 LPS,随后激活下游 NF-κB 信号通路,促进 IL-1β、IL-6、TNF-α 等促炎因子的表达。
这套反应本身并不是坏事。短时间内,它是免疫系统面对细菌入侵时非常重要的防御机制。
需要关注的是刺激的持续时间和频率。
如果微生物来源的信号长期、反复进入免疫系统,TLR4—NF-κB 这套通路就可能持续处于被激活的状态。
这种由肠源性 LPS 持续进入循环所形成的状态称为代谢性内毒素血症。
也就是说,问题不一定来自某一次强烈刺激,而可能来自低强度、长时间、反复出现的免疫输入。
这也是环境暴露研究越来越重视长期累积的原因。
同样是外界暴露,进入免疫系统的信号量未必相同
我们通常衡量环境暴露,会关注空气中有多少 PM2.5、食物中有多少某种化学物,或者一个人接触了多久。
但从人体内部来看,外界暴露量并不等于免疫系统最终实际面对的生物学刺激量。
在两者之间,还隔着肠道微生态、微生物代谢、黏液层和上皮屏障等多个环节。
如果屏障完整,很多微生物成分仍然被限制在肠腔内;如果屏障通透性升高,免疫系统实际接收到的信号就可能不同。
从这个角度看,一个人的内部状态,本身就是环境暴露最终产生怎样生物学效应的一部分。
这提示我们:当外部暴露无法完全避免时,身体内部如何处理这些暴露,同样值得关注。
持续的抗原暴露,会增加免疫“误伤”的机会
如果刺激继续存在,问题还可能进一步深入到免疫耐受。
长期的细菌抗原输入可能参与分子模拟。
有些微生物抗原与人体自身蛋白在结构上存在一定相似性。免疫系统原本针对微生物建立的抗体或 T 细胞反应,在特定情况下可能同时识别人体自身成分。
例如,针对细菌 HSP60 产生的抗体可能与人体 HSP60 发生交叉反应,从而与血管内皮损伤和自身免疫性血管炎等过程相关。
编辑
到这里,除了关注炎症高不高,还可以看免疫系统是否还能准确区分什么需要攻击,什么应该耐受。
而在这套判断机制中,还有一个非常特别的分子节点。
它一边接收来自肠道微生物的代谢信号,一边也能直接感知某些环境污染物。
这个节点,就是 AhR。
芳香烃受体,AhR (Aryl Hydrocarbon Receptor)。
它最早因为能够响应二噁英等环境化学物而受到关注,因此很长时间里,人们把它理解为一个环境污染物感受器。
但现在看来,AhR 的角色远比这复杂。
在肠道中,它本身就是连接微生物代谢、黏膜屏障、免疫调节的重要节点。
同一个受体,可以接收完全不同来源的信号
正常情况下,部分乳杆菌属、双歧杆菌属可以参与色氨酸代谢,产生吲哚-3-醛、吲哚-3-乙酸等吲哚类代谢物。这些微生物来源的小分子可以作为 AhR 的天然配体。
AhR 被激活后进入细胞核,与 ARNT 结合,再作用于特定 DNA 调控区域,影响下游基因表达。
在生理状态下,这类信号有助于促进 IL-22 产生,并参与 Foxp3+ Treg 的维持,从而支持黏膜屏障和免疫耐受。
这也是为什么,有时候就只看菌群组成还不够,决定宿主接收到什么信号的,是这些微生物正在进行怎样的代谢。
污染物也能进入这套信号系统
问题在于,AhR 并不只识别微生物来源的配体。
二噁英、PCB(多氯联苯)、PAH(多环芳烃)等环境污染物,同样可以与 AhR 结合。而且部分外源化学物对 AhR 具有更高的亲和力,并可能造成更加持续的受体激活。
以 TCDD 为例,研究提出,这类外源配体可能干扰 AhR 正常的降解和关闭过程,使信号持续存在。
同样是 AhR,被不同来源、不同强度、不同持续时间的配体激活,产生的免疫结果并不完全一样。
这也是 AhR 研究最值得关注的地方:环境化学物和微生物代谢物,实际上可能在竞争同一个宿主信号入口。
AhR信号方式改变→Treg/Th17 平衡也改变
AhR 信号异常后,一个重要的下游结果,是 Treg / Th17 平衡发生偏移。
Treg 负责维持免疫耐受,限制过度炎症;Th17 则更偏向促炎反应。
编辑
研究指出,污染物造成的持续 AhR 激活可能抑制 Foxp3+ Treg 的形成,同时促进 Th17 相关反应,使 IL-17/IL-22 轴向更明显的促炎方向偏移。
空气颗粒物还可以通过 AhR 激活树突状细胞,增强抗原呈递,并进一步促进自身反应性 T 细胞的激活。
这也提供了一个理解个体差异的角度。面对同一种外界暴露,不同人的肠道微生态、色氨酸代谢能力、屏障状态和免疫调节基础并不会完全一致。
而有些环境影响,甚至可能比一次炎症反应持续得更久。因为它们能够进一步改变基因的使用方式。
AhR连接污染物、肠道菌群与免疫机制
编辑
doi.org/10.3389/fmicb.2026.1737229
我们的 DNA 序列通常不会因为一次环境暴露而改变。
但同一套 DNA,可以有完全不同的表达方式。
这就是表观遗传。
重金属,可能让部分 T 细胞基因更容易打开
DNA 甲基化是调节基因表达的重要方式之一,而维持这一过程的重要酶是 DNMT。
注:DNMT,DNA methyltransferase,DNA 甲基转移酶。通过SAM辅因子将甲基转移至胞嘧啶,调控基因表达与细胞分化,其异常与多种肿瘤的发生发展密切相关。
研究表明,重金属等环境毒物可抑制 DNMT 活性,引起 DNA 低甲基化。
在 CD4+ T 细胞中,CD11a(LFA-1)、CD70、KIR 等基因启动子区域发生低甲基化后,其表达增加,可能使 T 细胞逐渐呈现更强的自身反应性表型。
也就是说,即使最初的环境刺激已经过去,免疫细胞的功能状态仍可能留下一段时间的改变。环境暴露的影响,也就从一次免疫反应,进一步进入了免疫细胞本身的基因调控层面。
编辑
另一种变化发生在 Foxp3 上。
Foxp3 是维持 Treg 功能的重要调控因子。研究提到,当 Foxp3 启动子发生高甲基化后,其表达可能受到抑制,Treg 维持免疫耐受的能力也可能随之减弱。
这样一来,问题就更具体了:
一些原本该受限制的自身反应性 T 细胞可能更容易被激活,而负责维持免疫耐受的 Treg 调节作用又可能减弱。
当这两类变化同时存在时,免疫系统对自身组织的容忍边界就可能变得更不稳定,开始向不利的方向偏移。
不只是 DNA 甲基化,炎症基因本身也可能变得更容易启动
环境暴露还可以作用于染色质结构。
研究提到,PM2.5 和氧化应激能够改变 HDAC(组蛋白去乙酰化酶) 活性,使 IL-6、TNF-α 等炎症相关基因所在的染色质区域更加开放,也就是更容易被转录。
这里其实出现了一个很有意思的交汇。
前面我们讲过,菌群产生的短链脂肪酸,尤其丁酸,本身也具有HDAC抑制作用,并参与 Foxp3+ Treg 的调节。
也就是说,环境污染带来的氧化应激,与肠道微生物产生的代谢信号,可以在同一类表观遗传调节机制上发生交汇。
这也是为什么单纯讨论暴露了多少污染物,有时还不足以解释人与人之间不同的生物学反应。进入人体之后,这些外来信号并不是在一张白纸上发挥作用。它面对的,是一个原本就存在差异的代谢、微生态和免疫背景。
砷还可能通过 microRNA 改变炎症的刹车系统
表观遗传调控还包括 microRNA。
砷和 BPA 暴露可改变 miR-146a、miR-155 等免疫调节 microRNA 的水平。
其中,miR-155 过度表达会抑制 SOCS1。SOCS1 原本是细胞因子信号中的一个重要负调节因子,可以理解为 JAK/STAT 通路上的刹车。当 SOCS1 被抑制后,JAK/STAT 信号可能持续活跃,慢性炎症也更容易被维持。
所以,长期环境暴露值得关注的,它还可能逐渐改变免疫系统的反应阈值和调节方式。
而当这种状态持续足够久,另一个变化开始出现——免疫系统本身,也可能提前进入衰老。
我们通常用年龄来理解衰老。但对免疫系统来说,身份证上的年龄,不能解释全部差异。
同样是50岁,有些人的免疫系统仍然保持较好的调节能力;另一些人却可能已经出现更明显的慢性炎症、免疫耗竭和衰老细胞积累。
长期环境压力就是其中一个值得研究的因素。
研究表明,长期存在的氧化应激、DNA 损伤和慢性炎症,都可能推动免疫细胞更早出现衰老特征。
PM2.5、重金属等环境暴露与免疫细胞端粒缩短有关,并可能推动细胞进入复制性衰老。
注:复制性衰老指正常体细胞因反复分裂导致端粒不断缩短、触发DNA损伤应答,达到分裂极限后发生的不可逆增殖停滞状态。它与端粒酶活性降低密切相关。
衰老细胞会持续释放炎症信号
端粒不断缩短后,一些免疫细胞逐渐失去正常的增殖能力。但这并不意味着它们会安静地退出。
进入衰老状态的细胞可能形成 SASP(Senescence-Associated Secretory Phenotype,衰老相关分泌表型),持续释放 IL-6、IL-1β、MMPs、趋化因子等炎症信号。
这些信号又会改变周围组织环境,甚至推动邻近细胞出现衰老特征。
于是,一个循环开始形成:
慢性炎症和环境压力推动细胞衰老,而衰老细胞又继续制造炎症。
这也是炎症性衰老的重要特征——没有明显感染,身体却长期处于一种低水平、难以完全消退的炎症状态。
前面提到的肠源性 LPS,在这里也有了更长期的意义。研究提出,持续的 LPS 转位和 TLR4 刺激可能使免疫系统长期难以回到静息状态,并与免疫细胞出现耗竭表型有关。
动物研究:老龄菌群可参与推动炎症性衰老
这也引出了另一个问题:
随着年龄增长而发生的肠道菌群变化,只是衰老的结果,还是也可能反过来参与炎症性衰老?
动物实验给出了一些更直接的线索。
一项研究将老龄来源的肠道菌群转移给无菌小鼠,结果显示,这种菌群转移能够促进受体出现系统性炎症性衰老。也就是说,至少在这一动物模型中,老龄微生态本身具有推动炎症性衰老的能力,而不只是随着衰老被动发生变化。
另一项小鼠研究进一步发现,老龄小鼠肠道菌群来源的LPS能够激活TLR4,并增强巨噬细胞的炎症反应。
当然,目前菌群推动免疫衰老的直接证据仍以动物实验和机制研究为主,但这些研究至少提示:
长期环境压力作用于人体时,决定免疫系统最终处于怎样的状态的,可能不仅是外界暴露本身,还包括体内长期存在的炎症和微生态信号背景。
当这种状态继续积累,变化还会进一步进入 T 细胞和 B 细胞层面。
而这就把问题推向了下一步——免疫系统为什么会越来越容易把攻击指向自身组织?
免疫系统衰老之后,出现的并不只是防御能力下降。一些已经带有明显衰老特征的免疫细胞,反而会保留较强的炎症和组织攻击能力;与此同时,另一部分 B 细胞开始更容易产生针对自身成分的抗体。
免疫衰老因此并不是简单地让免疫反应越来越弱,而是让整个免疫系统的工作方式发生偏移。
类风湿关节炎和系统性红斑狼疮中的一些免疫细胞变化,就提供了两个很具体的例子。
T 细胞:衰老之后,组织攻击能力仍可能保留
在类风湿关节炎(RA)研究中,一类具有衰老特征的 CD4+CD28− T细胞受到关注。
这类细胞已经失去 CD28 共刺激分子,并表达 CD57、KLRG1 等衰老相关标志,但仍能够释放穿孔素(perforin)和颗粒酶(granzyme),产生直接的细胞毒性作用。
这类细胞可以在类风湿关节炎患者的关节滑液中积累,并被认为可能直接参与关节软骨损伤。
也就是说,免疫细胞变老之后,攻击能力与正常调控之间逐渐失去平衡。
编辑
B 细胞:针对自身成分的抗体更容易出现
研究关注到一类年龄相关B细胞(ABCs,Age-associated B Cells),在长期抗原刺激和细胞压力下,初始 B 细胞的发育可能受到抑制,而 ABCs 逐渐扩增。
与产生针对病原体的保护性抗体相比,这类细胞更倾向产生针对自身 DNA 和核蛋白的抗体,例如 anti-dsDNA 和 ANA。
在系统性红斑狼疮患者中,ABCs 的比例还与疾病活动程度以及狼疮性肾炎相关。
一个是具有组织损伤能力的 T 细胞积累,一个是更容易产生自身抗体的 B 细胞扩增。
当然,这并不是说某种污染物会沿着一条固定路径最终导致类风湿关节炎或系统性红斑狼疮。自身免疫病本身就是遗传、感染、环境和免疫状态等多种因素共同参与的复杂疾病。
表2 暴露体诱导的自身免疫和免疫衰老的细胞和分子特征
编辑
doi: 10.1016/j.fct.2026.116331
先降低外部压力,再稳住肠道这个界面;如果内部状态已经发生偏移,再找到具体环节进行纠正。
环境接触,既做减法,也可做加法
能减少的明显暴露,当然首先应该减少。比如说吸烟、二手烟、职业性污染物以及持续的高污染环境暴露等。
但环境健康研究正在出现另一个有意思的方向:环境并不只有有害暴露,还存在可能促进健康的有益暴露。
最近的一篇研究提出,有益暴露其中包括绿地、森林环境以及植物释放的挥发性化合物。
编辑
doi.org/10.1186/s40246-025-00882-y
比如森林空气中的α-蒎烯,在细胞实验中可以抑制 LPS 诱导的 MAPK/NF-κB 信号,并降低 IL-6、TNF-α、iNOS、COX-2;一些人体森林浴研究还观察到 NK 细胞数量和活性升高,而且变化可持续超过 7 天。
这种影响也不只体现在免疫细胞上。人体森林浴研究中,富含植物挥发物的森林环境还伴随尿液皮质醇、肾上腺素和去甲肾上腺素下降;短期森林停留后,也观察到血清皮质醇、尿肾上腺素和血压降低。
这为我们提供了一个很好的视角:环境干预未必只有躲开什么,未来也可能包括主动增加一些对免疫和压力调节更友好的环境暴露,比如说多接触户外大自然,空旷的草坪,森林等。
稳住肠道微生态和屏障,让它更有缓冲能力
当一部分暴露无法避免时,更现实的问题就变成:进入肠道以后,这套系统能不能维持稳定。
饮食
高纤维的地中海式饮食,比如更多蔬菜、水果、豆类、全谷物、坚果,配合适量鱼类,与更丰富、更稳定的肠道菌群以及较低的系统炎症相关。
研究表明,较高依从性的地中海饮食与 CRP、IL-6 等炎症指标降低以及更好的 T 细胞功能相关。
从菌群机制上也很好理解:膳食纤维给产短链脂肪酸菌提供底物,丁酸等代谢物又参与维持上皮屏障和 Treg 稳态。
益生菌、益生元
益生元、益生菌及合生元也被研究用于提高微生物多样性、屏障功能和 IgA 相关黏膜免疫。
酸奶、开菲尔、豆豉和泡菜等发酵食品富含益生菌。一些益生菌产生活性神经元化合物或充当载体。一些双歧杆菌和乳酸杆菌菌株分泌γ-氨基丁酸 (GABA),增加黏液分泌、强化紧密连接,并通过 SCFA 抑制 NF-κB 炎症信号。
不过,即使同样增加膳食纤维,有些人的菌群能够有效利用并产生预期代谢物,有些人却未必;不同益生菌菌株的活性、定植能力和代谢功能也差异很大。
植物来源的活性成分
除了直接补充益生菌、益生元,一些植物来源的活性成分也可能改变肠道中的生态选择压力。
比如在 LPS 诱导肠道炎症的小鼠模型中,山苍子精油干预后,肝脏和肠道中的TNF-α、IL-6、IL-1β 水平下降,同时 Lactobacillaceae、Lachnospiraceae 等菌群增加,并伴随结肠隐窝和上皮完整性的改善。
体外研究发现,香芹酚、肉桂醛、柠檬醛、百里香酚等植物挥发性成分,对C. perfringens、E. coli、部分Salmonella等潜在致病菌抑制更明显。
注:真实人体肠道中的有效剂量和长期影响还需要验证。
判断稳态偏移发生在哪里
如果一个人的问题主要是产丁酸功能不足,和 LPS 相关信号偏高或者屏障状态不佳,显然不一样。
因此,干预前不妨看一下菌群结构,微生态恢复力,短链脂肪酸、色氨酸等代谢功能有没有偏移,屏障和 LPS 相关信号是否异常等。
编辑
<来源:谷禾健康肠道菌群检测数据库>
已经发现偏移——做针对性的纠正
文中我们了解到,一些污染物进入体内会引发氧化应激和慢性炎症,那么针对已经出现的这些问题,也有一些干预措施。
多酚类
白藜芦醇在衰老或慢性炎症小鼠模型中,被观察到可以提高 T 细胞增殖和 NK 细胞活性,同时降低 IL-6、TNF-α。
姜黄素则在细胞和动物研究中表现出抑制 NLRP3 炎症小体、促进自噬以及上调 SIRT1 等作用。姜黄素的作用还有一部分经过肠道菌群。详见谷禾之前的文章:姜黄素与肠道微生物群之间的互作:姜黄素对健康影响的益处
其他例如绿茶儿茶素、可可等富含黄酮的干预,在部分老年人研究中与 NK 细胞活性、疫苗抗体反应以及炎症指标改善有关。
Omega-3
EPA、DHA一方面可以影响 PPAR 和 NF-κB 等炎症通路,另一方面还是消退素、保护素等促炎症消退介质的前体。
也就是说,不仅是减少炎症产生,还涉及帮助已经发生的炎症正常结束。
维生素D
维生素D参与巨噬细胞、树突状细胞以及T细胞分化。在一项针对维生素D缺乏老年人的随机临床试验中,维生素D联合N-乙酰半胱氨酸干预 8 周后,外周血单个核细胞中的 p16、IL-6、TNF-α 等衰老和炎症相关指标下降。
当明确存在营养缺乏时,纠正缺乏本身可能减少额外的免疫压力。
睡眠和运动
长期睡眠不足会提高 IL-6、TNF-α,削弱 T 细胞增殖,并影响抗体应答。
规律运动与更低的CRP、IL-6、TNF-α以及更年轻的 T 细胞组成相关;一些老年人阻力训练研究还观察到,SASP 相关炎症介质和 T 细胞衰老指标下降。
现实生活中,很多暴露剂量并不高,也不会让身体立刻出现明显反应。我们也很难做到生活在一个完全没有环境暴露的世界里。
更值得关注的是,这些长期、低剂量的外部信号进入身体以后,会经过怎样的微生物代谢、屏障和免疫调节,最终形成不同的生物学结果。
这也是我们为什么越来越关注肠道微生态。环境告诉我们,身体正在面对什么;肠道微生态则提供了一个观察身体内部如何响应这些信号的窗口。
未来研究也正从单一污染物模型,走向更接近真实生活的低剂量混合暴露;从横截面的菌群比较,走向菌群长期追踪;再把微生物组、代谢组、免疫指标和暴露数据结合起来,理解为什么面对相似的外部环境,不同人的生物学反应仍然可能不同。
干预没有统一答案,因为不同产品作用在不同节点;而肠道菌群检测可以帮助找到这些重要节点,并观察这个节点有没有按照预期发生变化。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献:
Daşdemir FO, Sari MF, Aktaş B, Kocazeybek B. The Exposome-Autoimmunity Axis: Environmental Xenobiotics, Gut Dysbiosis, and Potential Pathways to Immunosenescence. Food Chem Toxicol. 2026 Aug 10:116331.
Fouladi F, Bailey MJ, Patterson WB, Sioda M, Blakley IC, Fodor AA, Jones RB, Chen Z, Kim JS, Lurmann F, Martino C, Knight R, Gilliland FD, Alderete TL. Air pollution exposure is associated with the gut microbiome as revealed by shotgun metagenomic sequencing. Environ Int. 2020 May;138:105604.
Kim, J.J.H., Yang, T.B., Zhang, X. et al. Harnessing phytochemicals for engineering health solutions. Hum Genomics 20, 36 (2026).
Li, Z., Li, Y., Yurong, T. et al. Microplastics, the gut microbiome and ageing: mechanisms and intervention strategies. Environ Geochem Health 48, 466 (2026).
Merra, G.; Gualtieri, P.; La Placa, G.; Frank, G.; Della Morte, D.; De Lorenzo, A.; Di Renzo, L. The Relationship between Exposome and Microbiome. Microorganisms 2024, 12, 1386.
谷禾健康
就在前不久,世界卫生组织将阿斯巴甜列为可能致癌物,引发了人们不小的热议。阿斯巴甜作为人工甜味剂的一种,不提供任何卡路里,就可以提供蔗糖几百倍的甜度。
人工甜味剂几乎不提供热量,或只提供极少的热量,所以深受健身人士及减肥人群的喜爱。人工甜味剂相关产业发展迅速,许多无糖饮料、无糖冰淇淋、巧克力等食品中都有其身影。
除了人工甜味剂外,乳化剂、着色剂、防腐剂等食品添加剂也是现代食品产业的重要组成部分,用于维持或提高食品的口味、安全性、新鲜度和外观。
但随着食品中的添加剂越来越多,其对健康的影响正引起人们的担忧。在此背景下,食品添加剂对微生物群的影响受到广泛研究。
事实上许多国家允许的食品添加剂并不会直接对人产生有害影响,但是会改变肠道微生物及其代谢。近年来出现的证据表明食品添加剂和微生物群之间存在相互作用,这可能会间接影响宿主健康。
例如盐是用于食品保鲜的最常见天然添加剂之一。高盐摄入会改变肠道微生物群组成和粪便短链脂肪酸的产生,通过调节辅助T细胞17影响肠道免疫轴并促进局部和全身组织炎症,可能导致高血压和肥胖。
此外,人工甜味剂有可能引起糖代谢障碍。随着人工甜味剂摄入量的增加,患心血管疾病的风险上升,尤其是阿斯巴甜与脑血管疾病,安赛蜜和三氯蔗糖与冠动脉性心脏病的风险有关。
本文主要总结了食品添加剂中的人工甜味剂、多元醇、乳化剂、色素、防腐剂对人体肠道微生物的影响,并间接导致了一些宿主代谢的变化,已有研究发现过量摄入食品添加剂与肠道炎症之间存在关联。在最后,我们提出了一些有助于减轻食品添加剂对身体的损害的小建议。
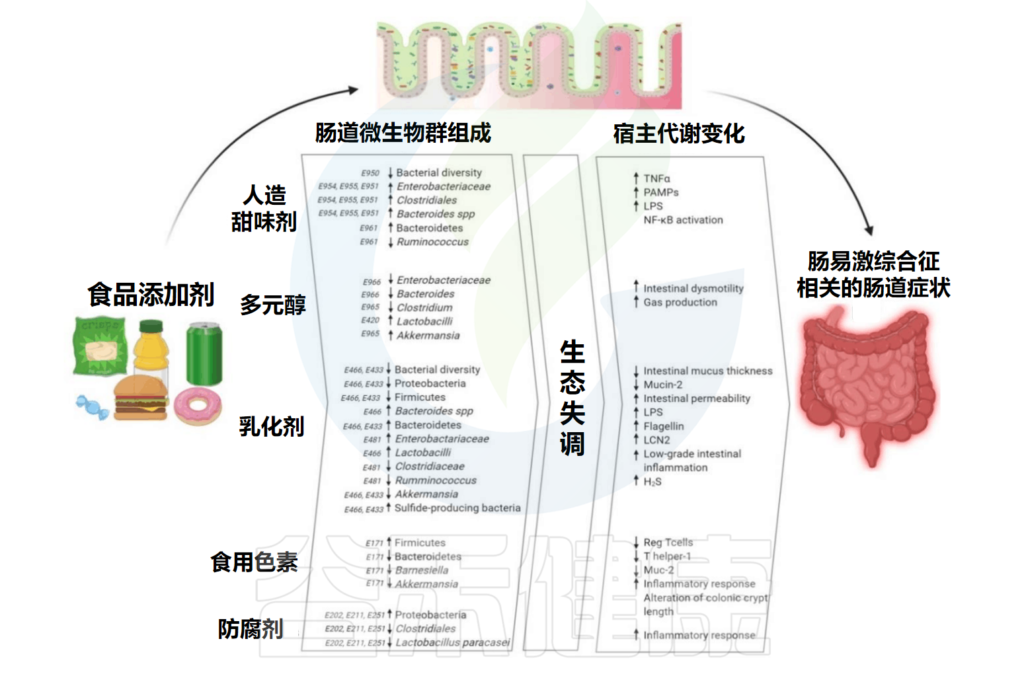
Rinninella E,et al.Int J Environ Res Public Health.2020
甜味剂与食品风味和人体健康密切相关,由于现在许多人们重视对身材的管理,无热量人工甜味剂逐渐兴起,其是蔗糖的替代品,特点是能够在不增加热量摄入的情况下具有更高的甜味强度,不会增加热量或引发血糖反应。
其中包括阿斯巴甜、安赛蜜、三氯蔗糖、糖精、纽甜和相应的化合物,主要存在于无糖饮料、无糖糖果和乳制品中。目前的研究已观察到人工甜味剂引起的肠道微生物群和代谢物的改变。
阿斯巴甜是一种低热量、强效的人造甜味剂。
•阿斯巴甜会改变人体肠道微生物的多样性
在人类中,阿斯巴甜可能不会改变粪便微生物群的丰度,但会改变其多样性。产生短链脂肪酸的细菌(例如双歧杆菌和另一项研究中检测到Blautia coccoides和拟杆菌/普雷沃氏菌比例下降。
•阿斯巴甜会影响短链脂肪酸浓度
在动物实验中,经阿斯巴甜处理后,厚壁菌门和柔嫩梭菌属(Clostridiumleptum)的丰度较高,肠球菌和副萨特氏菌 (Parasutterella)的丰度较低。
注:厚壁菌门和柔嫩梭菌都是重要的产丁酸菌属。
而在另一项人体研究中,随着阿斯巴甜的摄入,血清、粪便和盲肠内容物中的短链脂肪酸(包括丙酸和丁酸)浓度有所增加。
鉴于阿斯巴甜在不同动物和体外研究中存在一定的差异,阿斯巴甜对人体短链脂肪酸的影响还需要更多的实验研究,但目前可以确定的是,阿斯巴甜的摄入对人体短链脂肪酸的含量有影响。
阿斯巴甜存在一定的安全隐患!
需要注意的是,苯丙酮尿症患者苯丙氨酸代谢困难,应控制阿斯巴甜的摄入量。并且在此之前,美国一项研究发现,阿斯巴甜还会导致小鼠产生焦虑行为,这种影响还会跨代遗传。
阿斯巴甜对革兰氏阴性菌N-酰基高丝氨酸内酯(AHL)具有显著的抑制作用,通过群体感应抑制影响肠道微生物群落的平衡,从而促进消化系统疾病的进展。
此外,法国一项大规模前瞻性队列研究的结果表明,较高的人工甜味剂消耗量(尤其是阿斯巴甜)与心血管疾病风险增加之间存在潜在的直接关联。
安赛蜜,又称AK糖,是一种常用的人造甜味剂,也适合1-3岁儿童用于特殊医疗项目。
安赛蜜的可接受每日摄入量为9毫克/公斤体重
•安赛蜜在改变肠道微生物时具有性别特异性
在一项研究中,安赛蜜的摄入量在改变肠道微生物及其代谢物方面表现出高度的性别特异性。
在女性中,观察到乳杆菌属(Lactobacillus)和梭菌属(Clostridium)的丰度较低,Mucispirillum的丰度较高;而在男性中,拟杆菌属、萨特氏菌(Sutterella)、Anaerostipes有所增加。
•过量的安赛蜜会引起肠道炎症
在怀孕和哺乳期间将小鼠暴露于三氯蔗糖和安赛蜜会改变其后代肠道微生物群的α和β多样性,厚壁菌门增加和潜在抗炎细菌Akkermansia muciniphila的极度减少。
抗生素治疗后施用安赛蜜还会诱导硫酸盐还原菌脱硫弧菌的扩增以及结肠中促炎细胞因子的较高表达。
在炎症性肠病患者的粪便样本中,安赛蜜治疗后抗炎细菌减少,并伴有一些细菌功能改变,如脂多糖和胆汁酸合成。这表明安赛蜜诱导的肠道微生物组和代谢物扰动可能是破坏肠道稳态的因素,这可能会增加炎症性肠病的风险。
此外,安赛蜜可能会通过菌群失调引起吲哚美辛诱导的肠道损伤。
三氯蔗糖又名三氯半乳蔗糖,其甜度是蔗糖的600-650倍。
•长期摄入三氯蔗糖会改变肠道菌群并影响胰岛素水平
在人类研究中,摄入三氯蔗糖并不会在短期中影响肠道微生物,而年轻人摄入十周可能会导致Blautia coccoides增加和嗜酸乳杆菌减少,并改变肠道菌群和血清中的胰岛素和葡萄糖水平。
注:B. coccoides是一种参与促炎途径的细菌。
•三氯蔗糖的摄入导致体内多种代谢物改变
三氯蔗糖的摄入导致了多种代谢物的改变。酪氨酸水平升高,而对羟基苯乙酸和肉桂酸水平降低。这些化合物可以抑制参与色氨酸代谢的活性氧的产生。
此外,胆汁酸含量受损,盲肠内容物中胆酸浓度较高,胆酸/鹅去氧胆酸比率较高。研究人员认为这些代谢物的变化将导致引发和维持肝脏炎症。
▷大胆推测:三氯蔗糖会增加结肠炎的易感性
根据现有证据,我们认为三氯蔗糖对结肠炎有害,会增加促炎细菌的丰度。
三氯蔗糖会增加2,4,6,三硝基苯磺酸诱发的结肠炎易感性,并导致拟杆菌门和变形菌门的水平升高,厚壁菌门和放线菌门的数量减少。
最近的一项调查还发现,三氯蔗糖可能会增加患结肠炎相关结直肠癌的风险。
邻苯甲酰磺酰亚胺,俗称糖精。是一种热量为0的甜味剂,其甜度为蔗糖的300~500倍,但吃起来会有轻微的苦味和金属味。大部分糖精会被吸收并最终通过尿液排出,而未被吸收的糖精则通过粪便排出体外。
•糖精的消耗导致黏膜炎症细胞富集并改变肠道通透性
最近的一项研究发现,糖精的消耗会导致粘膜炎症细胞的富集并改变小鼠的肠道通透性。
此外,用抗生素预处理的糖精暴露小鼠可诱导较低水平的粘膜炎症和肠道屏障功能障碍。这些发现表明肠道菌群失调被认为是介导这些异常的原因。
•大量食用糖精会导致菌群失调
盲肠内容物中糖精的高含量与需氧菌群的增加有关。糖精暴露会导致严重的菌群失调,从而导致葡萄糖不耐受。许多增加的类群属于拟杆菌门和梭菌目,但厚壁菌门和蓝藻门减少了。
在无菌小鼠中无法诱导代谢变化,但在移植肠道微生物群后却发生了代谢变化。糖精还会导致肝脏炎症,导致阿克曼氏菌、棒状杆菌(Corynebacterium)和Turicibacter增加,并减少Anaerostipes、瘤胃球菌(Ruminococcus)和Dorea。
纽甜的味道比蔗糖甜7000-13000倍。纽甜的摄入降低了粪便微生物组的α多样性并改变了β多样性。
观察到厚壁菌门数量急剧下降。拟杆菌门,尤其是拟杆菌属的丰度增加。值得注意的是,毛螺菌科和瘤胃球菌科的多种成分显著减少,包括Blautia、Dorea、Oscillospira和瘤胃球菌属。
•纽甜的摄入改变了丁酸等物质的代谢
纽甜的摄入还改变了肠道微生物组的两种丁酸发酵途径。其中一条途径包括编码t4-羟基丁酰辅酶A脱水酶、丁酰辅酶A脱氢酶和乙酸辅酶A转移酶的三个基因的减少。这些基因参与了琥珀酸发酵为丁酸的过程。
另一方面,有关丙酮酸发酵丁酸的上游基因也被下调。此外,氨基酸代谢、脂多糖生物合成和抗生素生物合成增强,而脂肪酸和碳水化合物代谢途径减少。
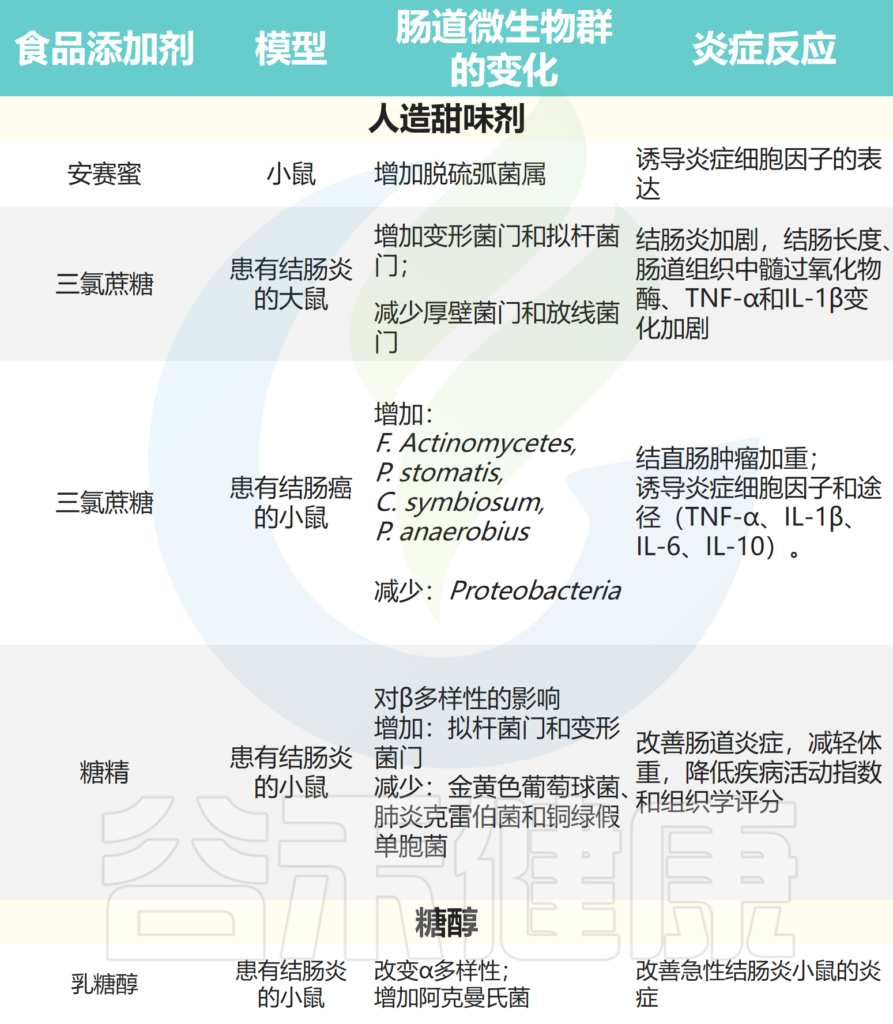
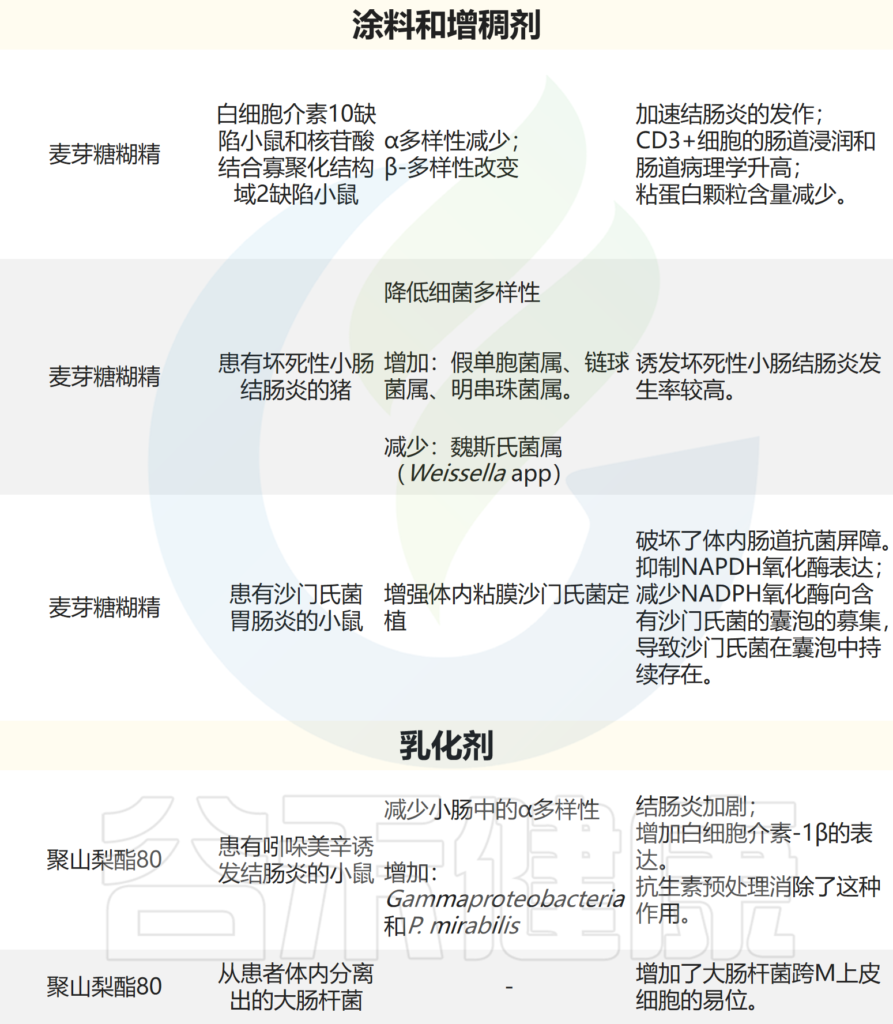
为了方便大家观看,谷禾将一些食品添加剂与肠道微生物群之间的相互作用整理在了下表:
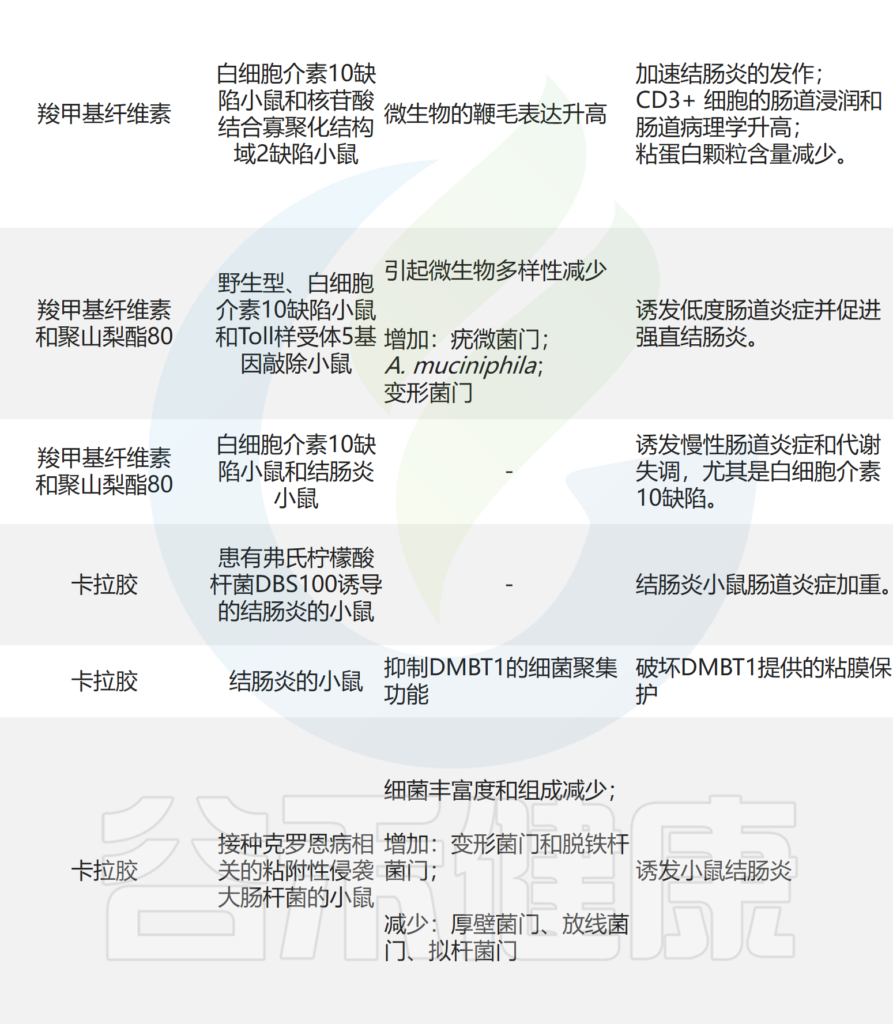
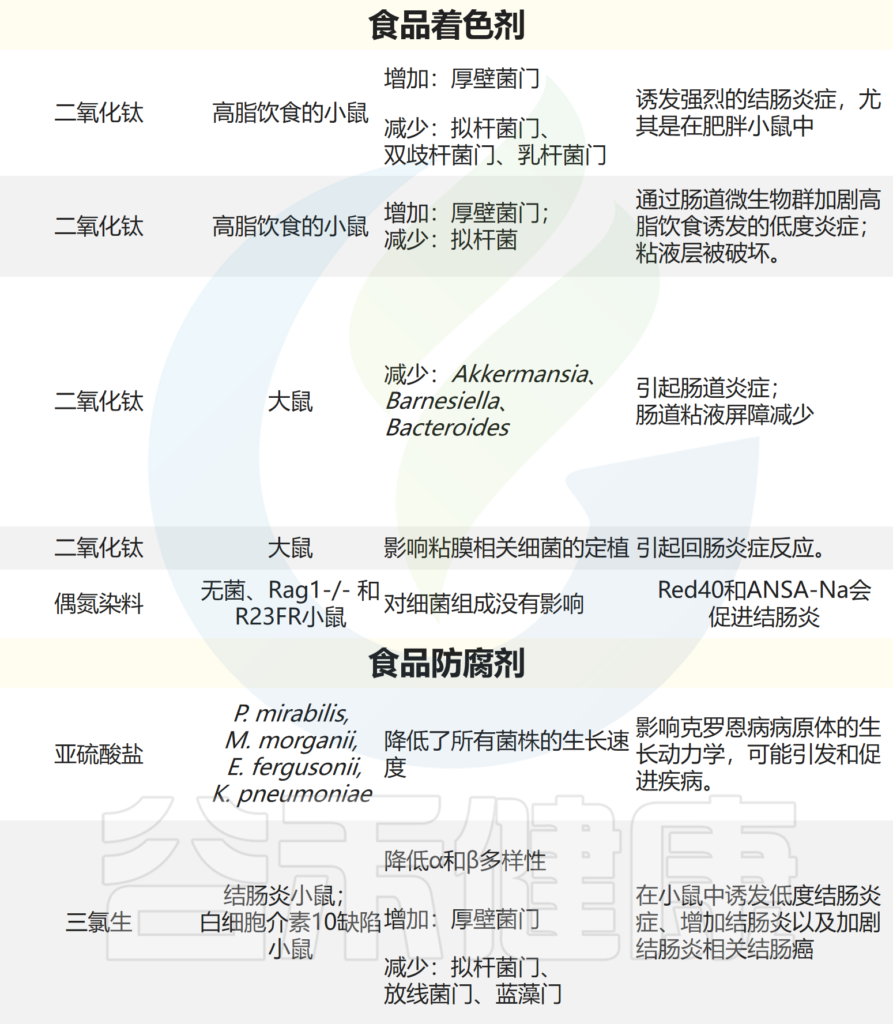
Liu C,et al.Nutrients.2022
人工甜味剂对肠道功能和代谢的影响
多项研究探讨了人工甜味剂对肠道微生物群和宿主生理功能的影响。他们证明人工甜味剂消耗与胰岛素抵抗和葡萄糖耐受不良增加之间的关联。
•富含人工甜味剂的饮食可能导致病态肥胖
研究表明,与对照小鼠相比,食用糖精的小鼠的聚糖降解显著增加。鉴于肠道细菌将聚糖发酵成短链脂肪酸,接触糖精可能会减少短链脂肪酸的产生。
丁酸盐通过肠-脑神经回路降低食欲和激活棕色脂肪组织而具有关键的抗肥胖作用。因此富含人工甜味剂的饮食可能与成年人的病态肥胖有关。
这些结果强调了一些人工甜味剂对聚糖发酵和短链脂肪酸产生的潜在不利影响,从而导致代谢紊乱。
•长期食用人工甜味剂会诱导炎症反应
此外,分析了给予糖精6个月后的小鼠肝脏,报告显示,与对照组相比,糖精处理的小鼠肝脏出现明显的肝脏炎症,且TNF-α基因表达升高。
注:TNF-α是炎症中的关键细胞因子,TNF-α的表达可以激活NFκB通路并诱导细胞损伤和炎症反应。
如前所述,在动物模型中,人工甜味剂的摄入可能会增加拟杆菌和肠杆菌科。肠杆菌科,如大肠杆菌、克雷伯菌属和变形杆菌属,位于粘膜上皮附近。
病原体感染、化学诱导的结肠炎或宿主免疫力不足可能导致肠道炎症,并刺激肠杆菌科的生长。因此,人工甜味剂似乎与肠道微生态失调、肠道炎症以及肠易激综合征相关的症状有关。
谷禾在下图中汇总了各种食品添加剂对肠道代谢产物的影响:
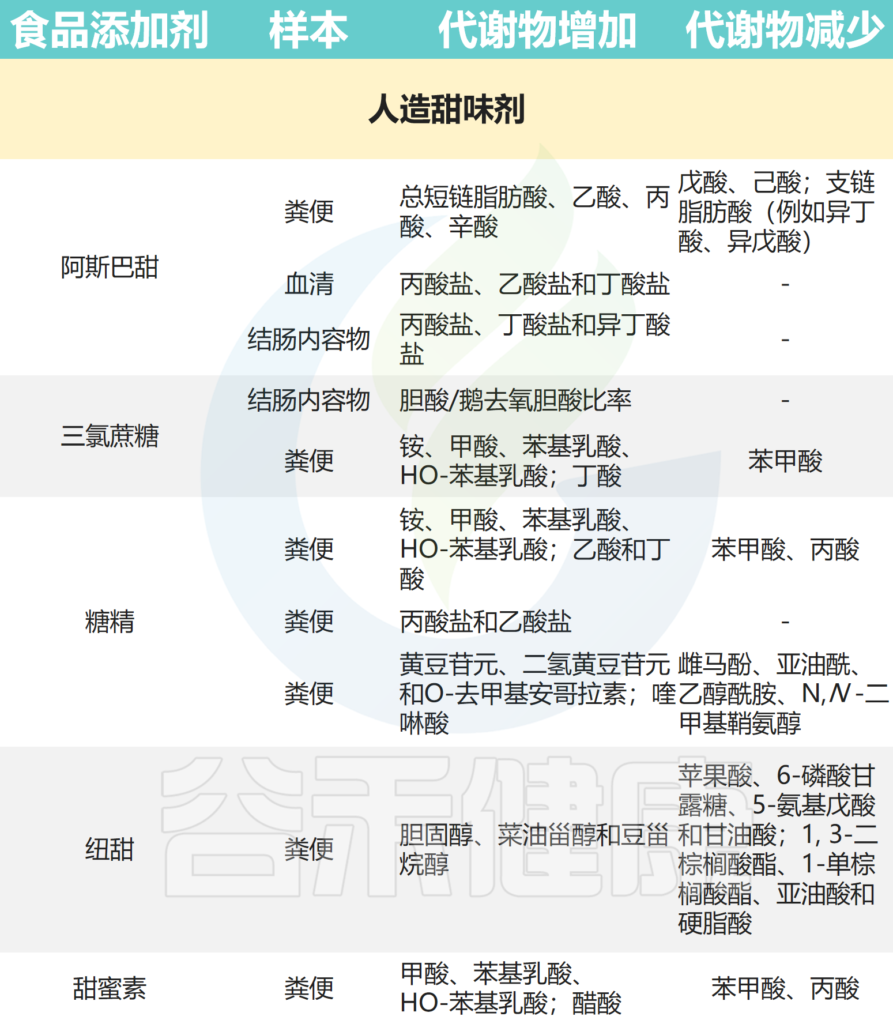
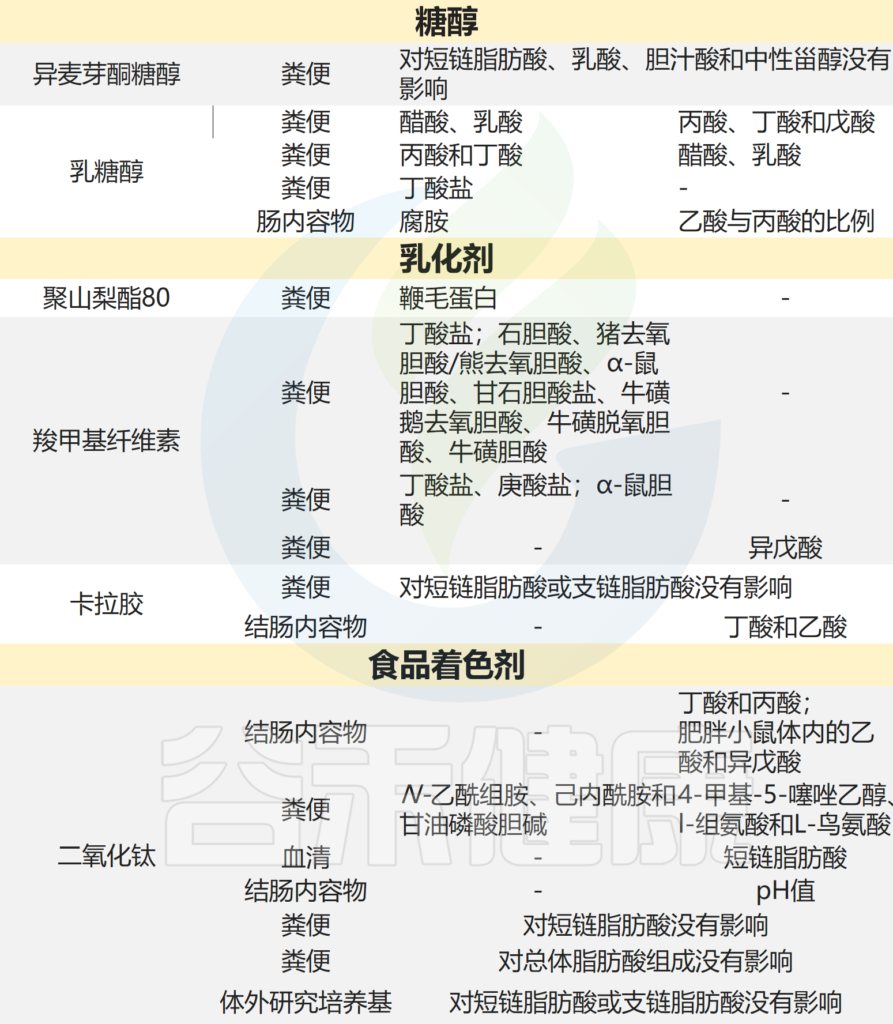
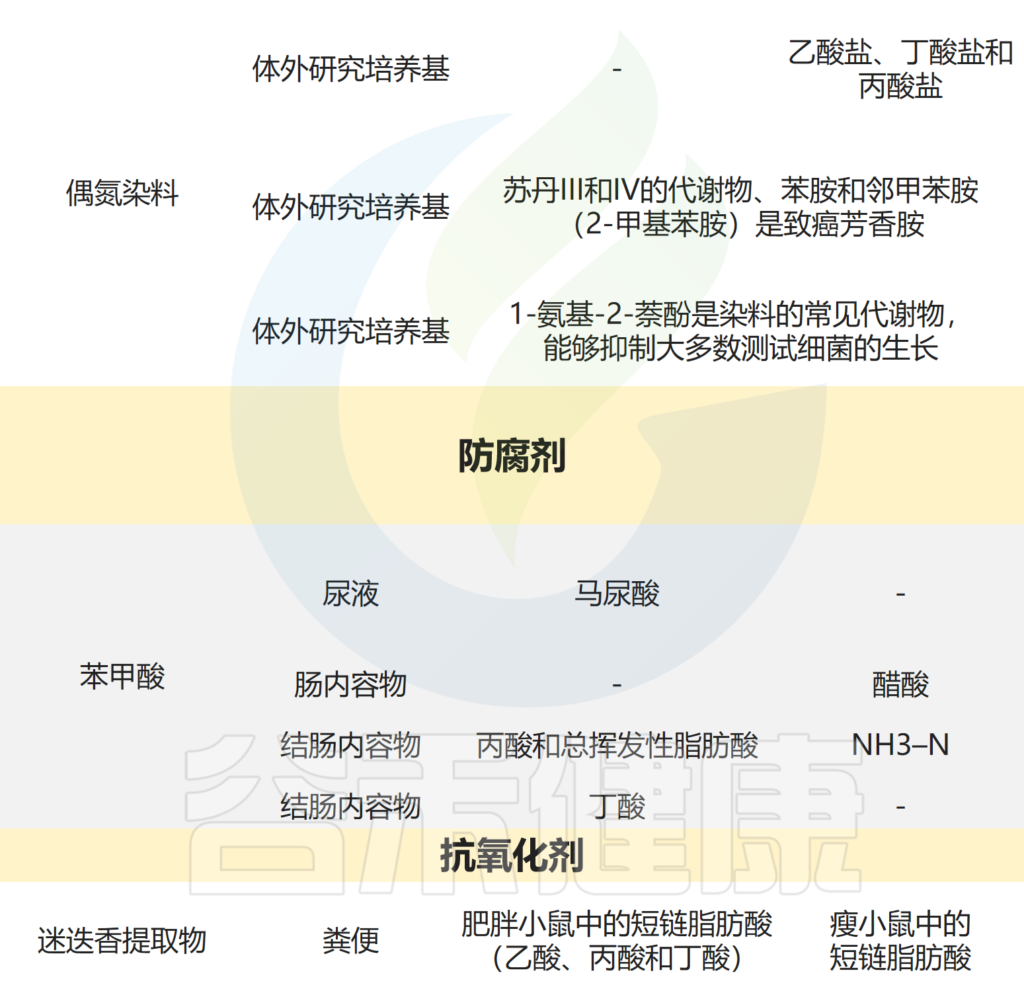
Liu C,et al.Nutrients.2022
多元醇,也叫糖醇,是一种有机物。主要种类有赤藓糖醇、异麦芽酮糖醇、山梨糖醇和木糖醇。它们天然存在于一些水果、蔬菜和蘑菇中。
其热量约为白糖的一半,并且只会导致血糖轻微变化。它们中的大多数在宿主中不能被很好地吸收或代谢,并且一部分会被结肠中的微生物群发酵。
糖醇对肠道微生物和代谢物的影响
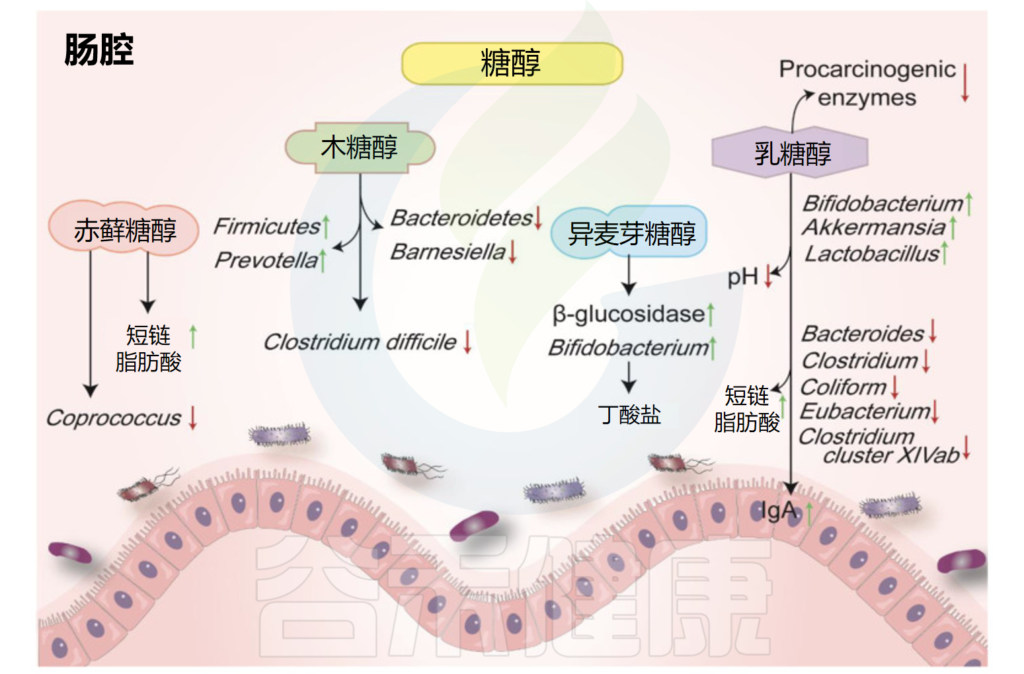
Liu C,et al.Nutrients.2022
赤藓糖醇在自然界中广泛存在,葡萄、梨、蘑菇、地衣中都有赤藓糖醇。摄入赤藓糖醇后,约90%可被小肠吸收,但代谢率很低,并主要以原形通过尿液排出体外。
•摄入赤藓糖醇增加了体内短链脂肪酸含量
在结肠中,肠道菌群可以代谢未吸收的部分。研究证明,摄入赤藓糖醇会导致丁酸和戊酸增加。考虑到到达大肠的赤藓糖醇数量有限,该化合物仅对肠道微生物群的组成产生轻微影响。
然而,赤藓糖醇会增强肠道微生物群以产生短链脂肪酸,从而减轻肠道炎症。赤藓糖醇被发现可以改善高脂肪饮食中的小肠炎症,并诱导粪球菌属丰度降低。
注:研究发现摄入赤藓糖醇后血清、粪便和白色脂肪组织中短链脂肪酸的浓度明显升高。
▷目前认为赤藓糖醇是一种对肠道稳定有利的物质
尽管缺乏赤藓糖醇对炎症性肠病的直接证据,但它被认为是一种对细菌友好的多元醇,可以稳定肠道微环境,并且可以降解为对炎症性肠病友好的代谢物。
异麦芽酮糖醇长期以来一直在食品和制药工业中用作甜味剂。微生物可以很容易地降解结肠中未吸收的异麦芽酮糖醇。
•异麦芽酮糖醇提高双歧杆菌的丰度
最近的研究认为它是一种益生元。在人类肠道中发酵的异麦芽酮糖醇可提高双歧杆菌的丰度并抑制致病菌,此外还降低了细菌β-葡萄糖苷酶的活性。
粪便中的短链脂肪酸、乳酸、胆汁酸、中性甾醇、苯酚和对甲酚也发生了变化。一些双歧杆菌菌株可以在体外发酵异麦芽,产生更高含量的丁酸盐。然而,暴露于异麦芽后没有发现不同的基因表达。
尽管很少有临床试验探讨异麦芽酮糖醇对肠道炎症的影响,但异麦芽酮糖醇可能被认为是一种双歧多元醇,是肠道稳态和微环境的“亲密朋友”。
木糖醇是是从白桦树、橡树、玉米芯、甘蔗渣等植物原料中提取出来的一种天然甜味剂。木糖醇被认为是一种非致龋性甜味剂,常被应用于口香糖中。
•木糖醇有一定的抗炎作用并能抑制变型链球菌
据报道,木糖醇会影响肠道菌群,并对脂多糖诱导的炎症细胞因子表达具有抑制作用。在一项人体研究中,摄入包括木糖醇在内的低消化性碳水化合物会导致Anaerostipes spp和粪便中的丁酸盐显著升高。
木糖醇降低了粪便拟杆菌(Bacteroidetes)和Barnesiella属的水平,而厚壁菌门和普雷沃氏菌(Prevotella)的丰度增加。较低的木糖醇浓度还可以抑制有害的变形链球菌。
注:变型链球菌是口腔天然菌群中占比例最大的链球菌属中的一种,是龋病的主要致病菌。
因此,我们认为木糖醇可能有利于肠道菌群的生长和代谢,而不会对肠道产生低有害刺激。
其他食品添加剂对肠道菌群及其功能的影响
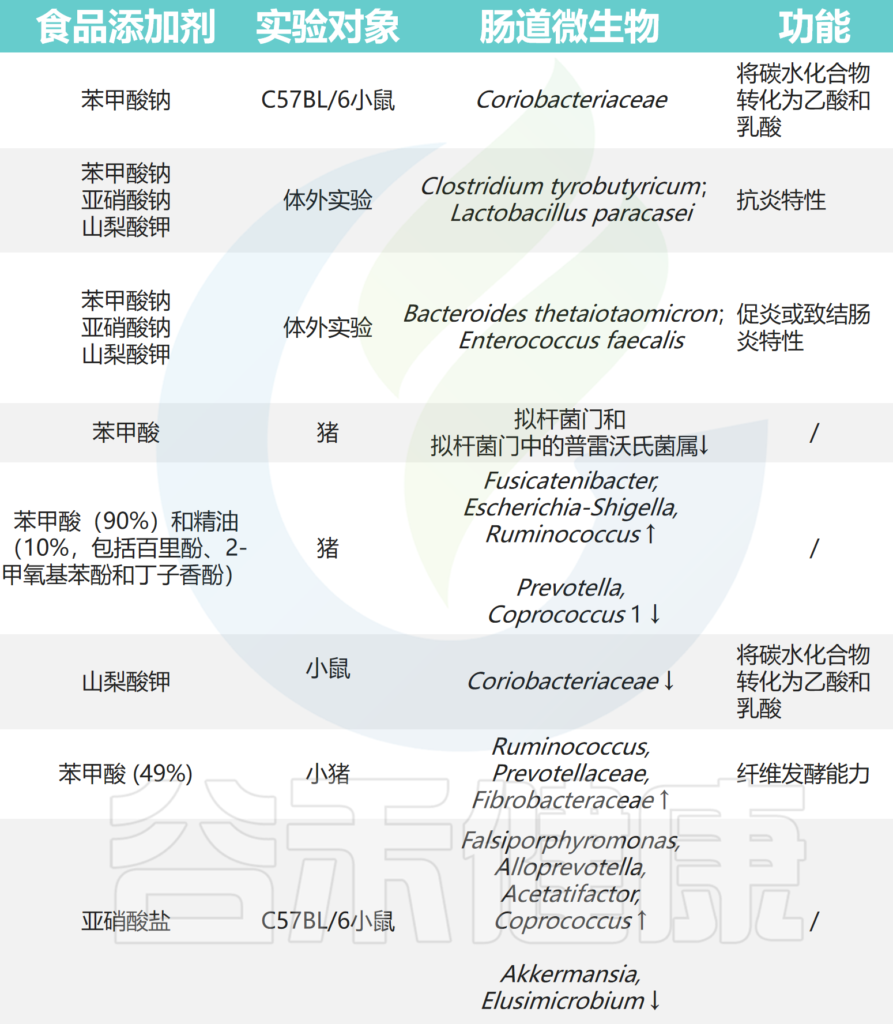
编辑
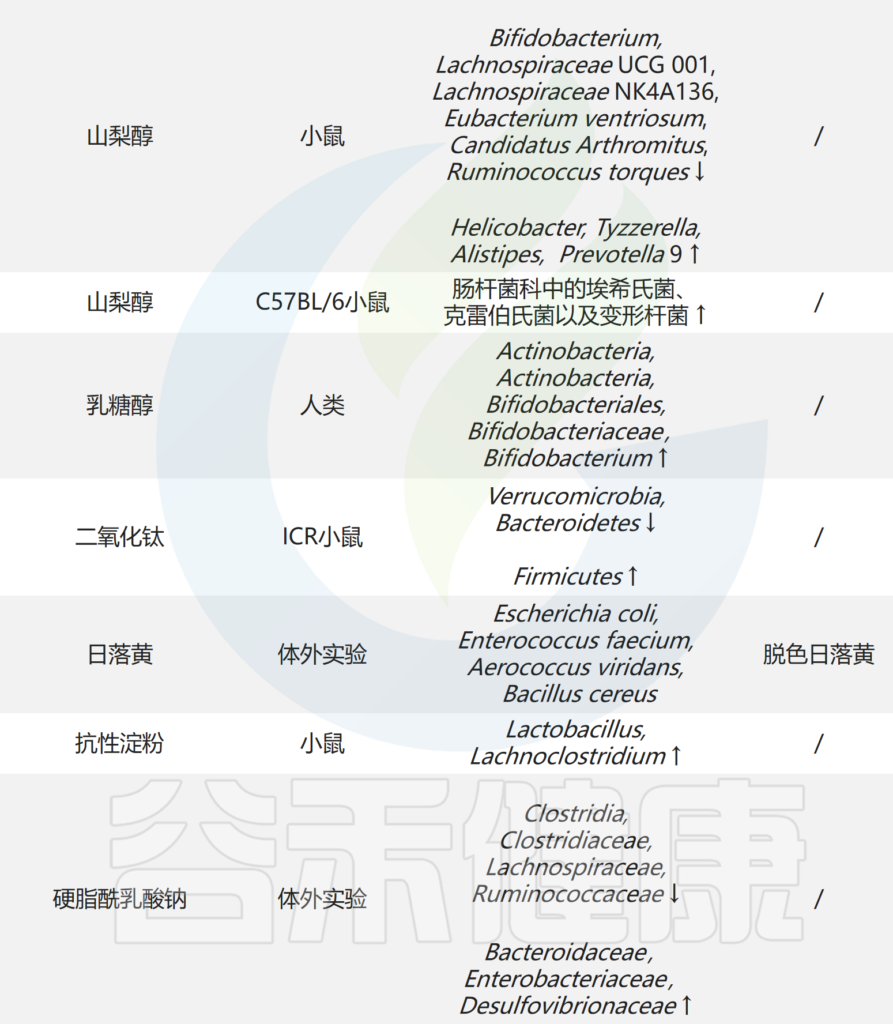
Zhou X,et al.Molecules.2023
多元醇引起的菌群变化对肠道健康有益
多元醇属于所谓的“FODMAP”(可发酵低聚糖、二糖和单糖以及多元醇)饮食类别。近年来,FODMAP饮食已成为肠易激综合征患者的宝贵治疗选择,对其限制将改善肠易激综合征治疗的结果。
“FODMAP”一词于2004年创建,用于定义高度可发酵的碳水化合物和多元醇。
乳化剂在日常生活中被广泛应用,因为它们能够稳定乳液并通过防止储存期间分离来延长保质期。它们还可以通过食品中的脂肪分子充当胶凝剂和表面活性剂。
常见的乳化剂包括羧甲基纤维素、聚山梨酯、卡拉胶等。它们存在于各种加工食品中,如酱汁、布丁、人造黄油和冰淇淋,在西方饮食中非常普遍。研究发现乳化剂会通过肠道微生物影响人体健康。
乳化剂通过肠道微生物诱发结肠炎的机制
编辑
Liu C,et al.Nutrients.2022
羧甲基纤维素(CMC)和聚山梨酯80(P80)常见于食用油、冰淇淋、蛋糕粉、糖霜和巧克力糖浆中。然而,接触乳化剂CMC和P80会对肠道微生物群产生负面影响。
•可能通过微生物群驱动肠道炎症
有益菌如短链脂肪酸的生产菌减少
聚山梨酯80的施用引起了与炎症性肠病类似的人类肠道微生物群的改变,导致有益的双歧杆菌属、重要的短链脂肪酸生产者如粪杆菌属和罕见小球菌属 (Subdoligranulum)以及Clostridium leptum的减少。
炎症性肠病相关病原菌增长显著
在小鼠中,摄入P80会加剧吲哚美辛诱发的回肠炎,从而降低肠道微生物群的α多样性。包括肠杆菌科在内的硫化物生产者的生长和炎症性肠病相关物种奇异变形杆菌的群集行为得到显著促进。
群集是一种鞭毛介导的运动,需要营养细胞分化成一种称为群集细胞的特殊细胞类型。奇异变形杆菌的群集能力与其在炎症性肠病中的发病机制高度相关。
增加病原菌的入侵
研究发现长期摄入羧甲基纤维素或聚山梨酯80会诱发低度肠道炎症,并促进易患这种疾病的小鼠出现严重结肠炎,最终导致细菌入侵增加。
卡拉胶,又名角叉菜胶,是从麒麟菜、石花菜、鹿角菜等红藻类海草中提炼出来的亲水性胶体。它们常见于调味牛奶、冰咖啡、乳制品冰淇淋和冷冻甜点中。
卡拉胶的代谢主要由宿主肠道微生物群进行。因此,肠道微生物直接与卡拉胶相互作用,影响肠道稳态。有趣的是,不同种类和分子量的卡拉胶对宿主有不同的影响。
卡拉胶可分为低分子量或高分子量、降解或未降解卡拉胶。
•低分子量的卡拉胶会增加肠道通透性并与结肠炎相关
低分子量卡拉胶已被证明可以增加肠道通透性并与结肠炎的发生有关。据报道,角叉菜胶会诱发和加重肠道炎症,改变肠道微生物群组成。
卡拉胶的摄入导致变形菌门和脱铁杆菌门(Deferribacteres)的增加,以及厚壁菌门、放线菌门和拟杆菌门的减少。
卡拉胶的不同异构体均被认为会对肠道生态产生有害影响。对于人类肠道微生物群,每种异构体都会诱导α-多样性的变化并增加微生物群的促炎潜力。
κ-卡拉胶和λ-卡拉胶显著富集了拟杆菌,而ι-卡拉胶减少了Faecaliberium,处理后鞭毛蛋白含量更高。κ-卡拉胶在高脂饮食模型中诱导了结肠炎,显著增加了志贺菌并减少了双歧杆菌。两种炎症相关细菌Alistipes finegoldii和Bacteroides acidifaciens的丰度也显著增加。
然而,高分子量卡拉胶可能具有良好的抗肿瘤和抗氧化活性。此外,之前的研究认为,肠道微生物组的改变仅在饮用水中添加卡拉胶时观察到,而在补充卡拉胶的饮食中则未观察到,这表明与蛋白质等其他食物成分的结合可能改变其构象并消除其对某些细菌的生物利用度。
▷推测:食用卡拉胶不利于肠道炎症患者恢复
在一项研究中,两种协同菌株:Bacteroides xylanisolvens 38F6A4和E. coli 38F6C1是从健康人的粪便中获得的,并给予无菌小鼠,与卡拉胶一起食用时会加剧肠道炎症。
对于缓解期的溃疡性结肠炎患者,在含卡拉胶的饮食治疗后复发率较高。鉴于卡拉胶对炎症性肠病患者和肠道菌群的直接有害作用,我们推测卡拉胶可能由于肠道菌群和肠道稳态紊乱而对炎症性肠病患者产生有害影响。
!
乳化剂可能通过肠道微生物影响宿主心理
研究结果表明,膳食乳化剂也可能对肠脑轴产生影响,并通过微生物群依赖机制诱导暴露者的心理/行为障碍。
肠道微生物群中聚山梨酯80和羧甲基纤维素依赖性的变化也是小鼠性别特异性行为和神经改变的原因。特别是,雌性获得了反社会行为,而雄性表现出更高的焦虑水平。
这两种变化都与微生物群特征和α-黑素细胞刺激素水平的明显变化相关,这两个神经肽参与调节焦虑相关行为、食欲和能量。
小结
乳化剂中羧甲基纤维素和聚山梨酯80过量食用会导致生态失调,粘液降解细菌过度生长,以及白细胞介素10或Toll样受体5进一步缺乏。
乳化剂可能还会增加肠上皮屏障中病原微生物的易位,引起肠道炎症,从而导致炎症性肠病发病率增加。
除此之外,乳化剂等胶体还会通过肠脑轴、肠肝轴、肠道与骨骼、心血管之间的联系进一步影响人体代谢和健康。
其他乳化剂在体内的生理影响
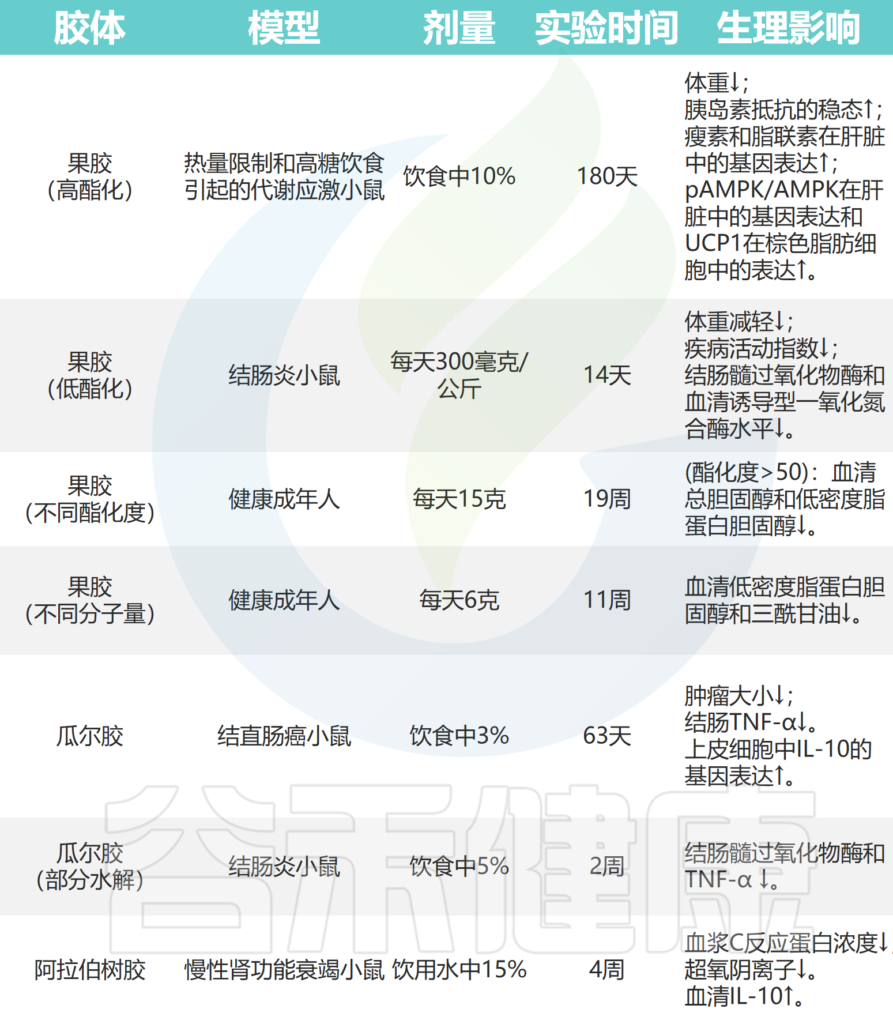
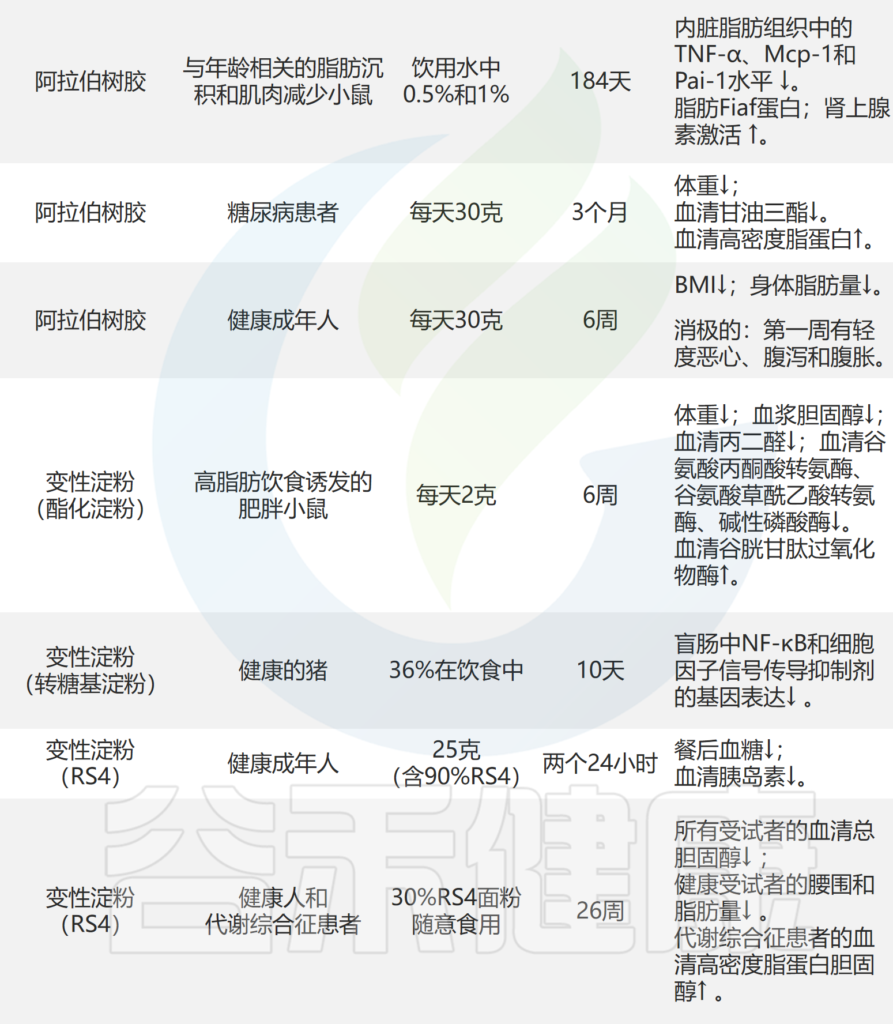
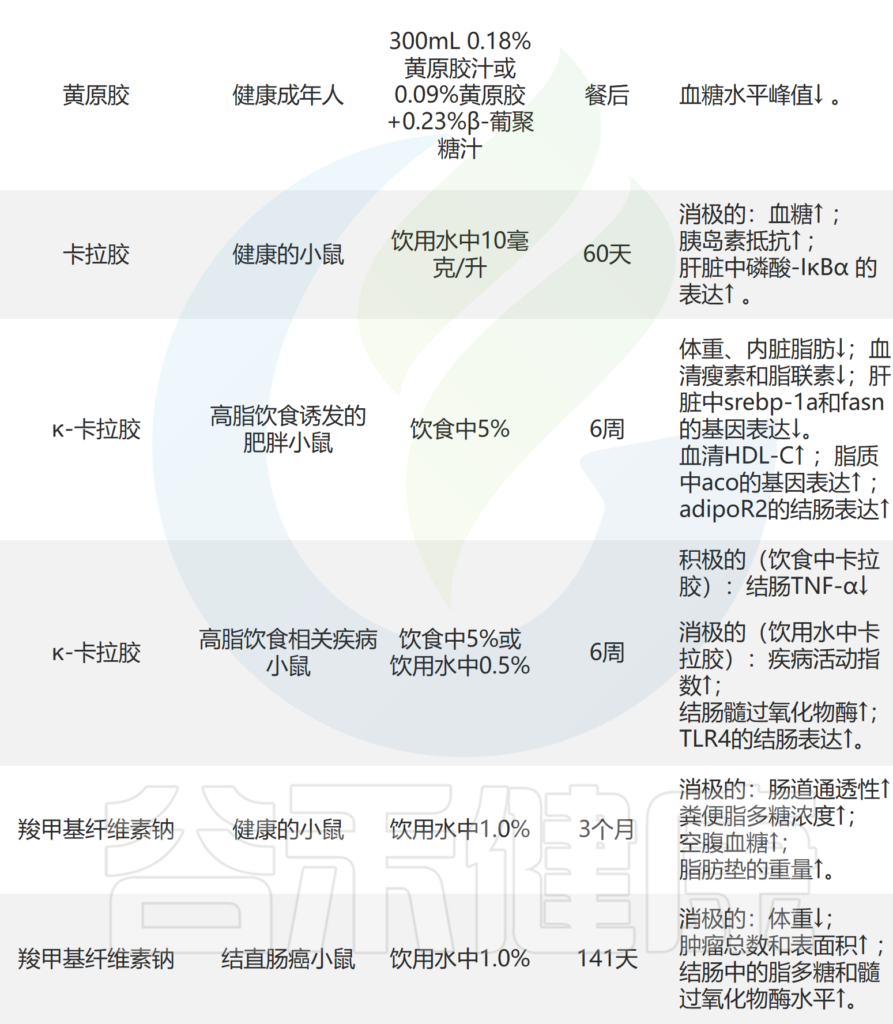
Tan H,Nie S.FEMS Microbiol Rev.2021
乳化剂和相关微生物代谢对人体的影响
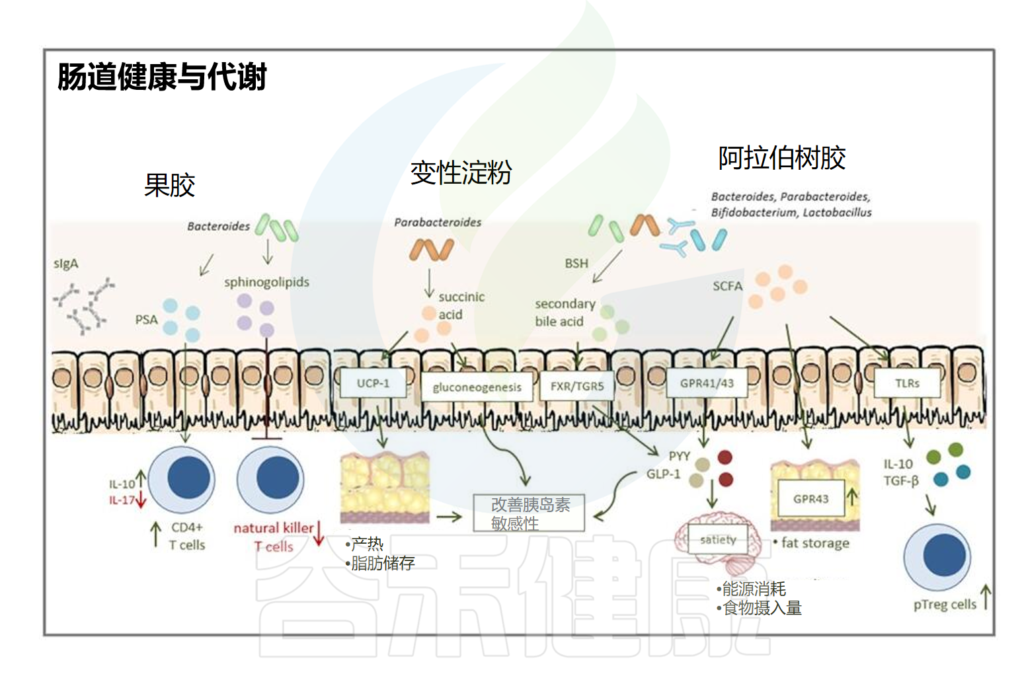
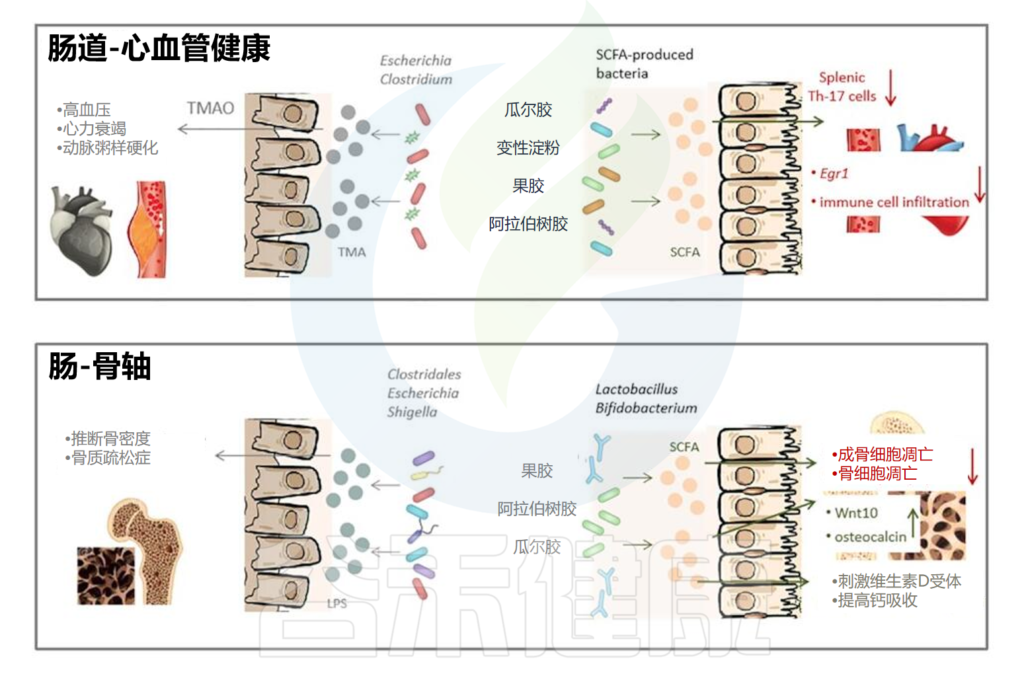
编辑
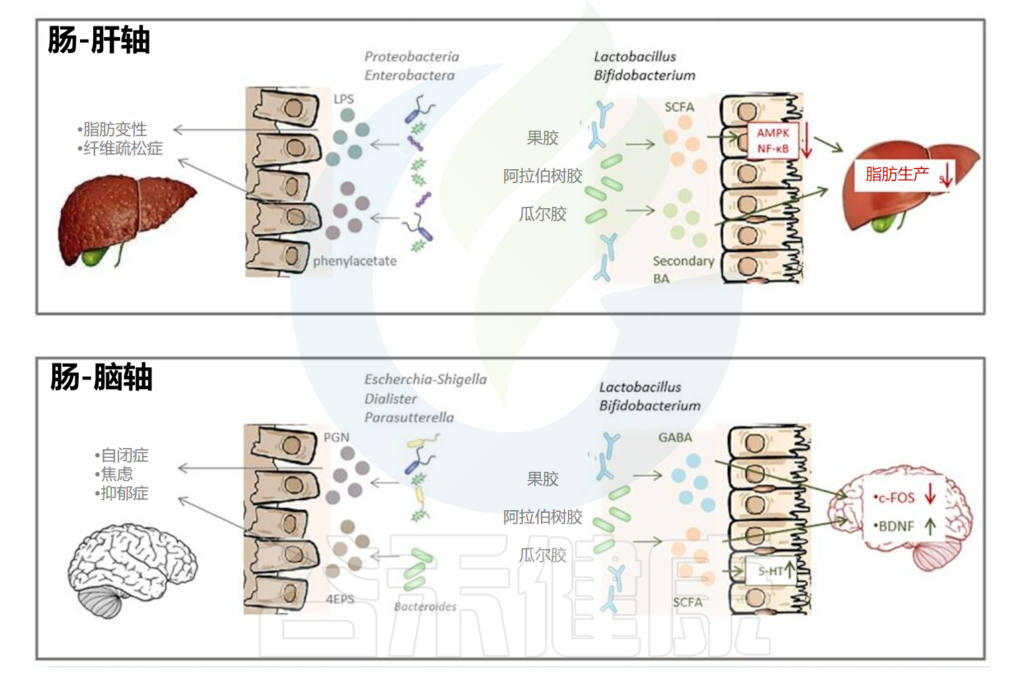
Tan H,Nie S.FEMS Microbiol Rev.2021
食品着色剂又称食品色素,是以食品着色为主要目的,赋予食品色泽和改善食品色泽的物质。
食品着色剂主要添加到奶酪、酱汁、冰淇淋、糕点、糖果、巧克力和口香糖中。
二氧化钛(TiO2)是我国常用的食品着色剂,通常用作食品中的增白剂或增亮剂。
•二氧化钛影响肠道保护细菌的丰度
近年来,各种研究试图确定口服二氧化钛对小鼠和人类肠道微生物群组成的影响。在用二氧化钛处理的小鼠中,与对照组相比,观察到厚壁菌门显著增加,拟杆菌门减少。特别是,巴恩斯氏菌(Barnesiella),一种关键的保护性肠道细菌,其丰度受到二氧化钛暴露(160mg/kg/天,持续28天)的显著影响。
巴恩斯氏菌(Barnesiella)可以清除肠道中的有害细菌。消除对万古霉素耐药的肠球菌的定植,并抑制抗生素耐药细菌的传播。它还可以改善环磷酰胺等抗癌化合物的性能。
巴恩斯氏菌(Barnesiella)的减少可能与炎症性肠病的发病机制有关。此外,它们导致结肠中的炎症浸润和线粒体异常,粪便中Turicibacter属和格氏乳杆菌(Lactobacillus gasseri)和Lactobacillus NK4A136_group的增加。
•高剂量的二氧化钛会诱导肠道炎症加剧
在人类中,添加二氧化钛会导致肠道微生物群多样性适度下降,并导致卵形拟杆菌(Bacteroides ovatus)和Clostridium cocleatum减少。
卵形拟杆菌(Bacteroides ovatus)被誉为新一代益生菌,在肠道免疫、肿瘤治疗、膳食纤维代谢方面发挥重要作用。
剂量反应实验表明,单独使用微量二氧化钛对两组巨噬细胞的吞噬作用没有影响。然而,高剂量的二氧化钛与细菌抗原协同作用,可促进巨噬细胞产生 IL-8、肿瘤坏死因子-α和IL-10,并损害其转化生长因子-β分泌/吞噬细胞活性。
据报道,喂食富含二氧化钛饮食的小鼠肠道炎症加剧。特别是,微生物群组成发生了显著变化,活性氧释放增强,NLRP3炎症小体激活。
!
食品着色剂会影响肠道稳态
二氧化钛等食品着色剂可能会影响肠道稳态。事实上,各种研究已经证明了二氧化钛暴露与对肠道微生物群功能性不利影响之间的潜在关联。
炎症反应加剧
在口服二氧化钛一周(10mg/kg体重/天)的大鼠中,在派尔贴片的免疫细胞和参与炎症反应的调节性T细胞中检测到二氧化钛。具体而言,在二氧化钛暴露后,从Peyer贴片中分离的免疫细胞的刺激显示辅助性T细胞减少,IFN-γ分泌增加,Th1/Th17炎症反应增加。
注:更进一步研究表明二氧化钛暴露与啮齿动物肠道疾病和结直肠癌的发展之间可能存在关联。
短链脂肪酸水平降低
研究了小鼠体内不同剂量的二氧化钛(2、10、50 mg/kg体重/天),并报告了高剂量暴露后短链脂肪酸水平的降低、粘液相关基因表达的降低、炎症反应的增加和结肠隐窝长度的改变。
不同食品着色剂对粘膜屏障和肠道微生态的影响
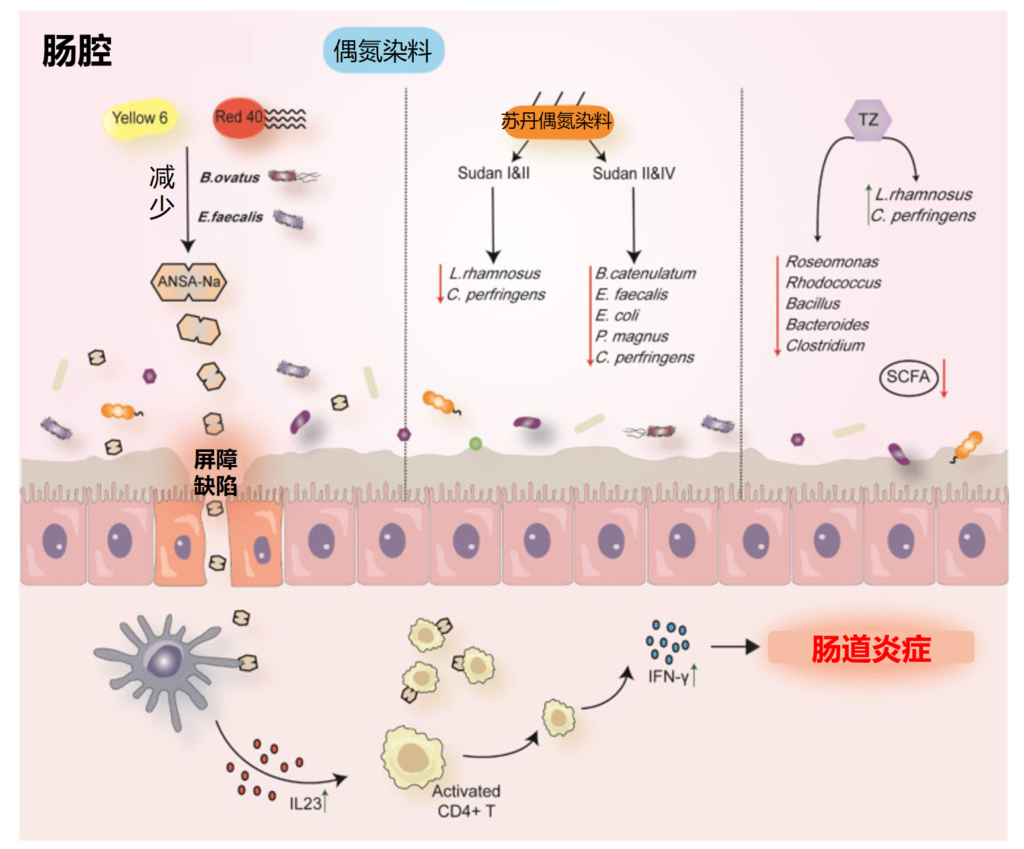
Liu C,et al.Nutrients.2022
所有这些发现表明,由于暴露于二氧化钛等食品着色剂而导致的菌群失调可能导致微生物群失调,其中特定科和属细菌的变异可能参与炎症性肠病的发病机制。
食品防腐剂可以延缓食品的降解,延长食品的保质期,限制微生物的生长,抑制食品的氧化。
防腐剂的益处和安全性存在争议,许多常见的防腐剂,如苯甲酸、山梨酸钾、亚硝酸钠和亚硫酸钠以及银纳米颗粒被报道可以诱导肠道微生物群的改变。
美国儿科学会警告说,防腐剂可能与恶化的多动行为或致癌风险有关。
苯甲酸和苯甲酸钠均可作为食品防腐剂,因为它们能够限制病原微生物的生长。所有吸收的苯甲酸均可完全降解为马尿酸。
•适量的苯甲酸会提高有益微生物的水平
最近的研究发现苯甲酸和苯甲酸钠通过调节氧化状态和免疫状态对肠道屏障功能和肠道微生物群的有益影响。
苯甲酸处理增强了回肠微生物群的生物多样性,以剂量依赖性方式降低了总需氧细菌的丰度。它还会减少十二指肠中革兰氏阴性菌的丰富度。在小猪中,苯甲酸处理增加了肠绒毛的高度,提高了有益微生物(例如双歧杆菌和乳杆菌)的水平,并减少了有害微生物的数量。
•过量摄入可能会破坏肠道屏障
然而,过量摄入苯甲酸可能会通过氧化还原状态破坏肠道屏障。
最近的研究报告称,苯甲酸增加了小鼠中诱导变形菌失调的易感性。值得注意的是,变形菌的增殖被认为是生态失调的潜在诊断标志物,并且与炎症性肠病等疾病的风险相关。
虽然现有的研究对苯甲酸表现出相互矛盾的观点,仍需要更多的研究来阐明其对肠道菌群和肠道炎症的影响。
山梨酸钾是一种低毒防腐剂,能强烈抑制腐败细菌和霉菌,其对感官特性影响轻微。
•山梨酸钾会降低肠道微生物多样性
先前的研究报道,山梨酸钾通过改变宿主免疫来抑制肠道微生物群的生存能力。暴露于山梨酸钾显著降低了斑马鱼肠道中IgG、IL-1β和TNF-α的含量,并激活了免疫系统。
在属水平上,有益菌粪杆菌(Faecalibacterium)以及病原菌气单胞菌(Aeromonas)和甲基杆菌(Methylobacterium)的含量呈现显著下降趋势。在体外,施用山梨酸钾后,普氏粪杆菌的生长也显著下降。
•革兰氏阳性菌可能阻碍山梨酸钾的传递
值得注意的是,山梨酸钾的亲脂性在调节不同类型的肠道微生物群中发挥着重要作用。革兰氏阴性细菌细胞壁中含有大量脂质,从而抑制转录和碳水化合物代谢途径。然而,革兰氏阳性菌含有较高的肽聚糖含量,可能会阻碍山梨酸钾的传递。大肠杆菌已被证明通过其外排泵机制对山梨酸钾具有抗性。
亚硫酸钠是常见的食品防腐剂之一。
•亚硫酸钠对人体有一定的危害
它强烈抑制普拉梭菌(Faecalibacterium prausnitzii)的生长。干酪乳杆菌、鼠李糖乳杆菌和植物乳杆菌因具有产生乳酸的能力而被认为是有益的肠道细菌,但它们也减少了。
在另一项研究中,亚硫酸钠持续降低奇异变形杆菌、Escherichia fergusonii、摩氏摩根菌(Morganellamorganii)的活力。亚硫酸钠对肠道有益菌较强的抗菌能力,可能诱发肠道疾病。
•具有抗炎特性的细菌可能对防腐剂更敏感
在一项体外研究中,发现人类肠道微生物对亚硝酸钠、苯甲酸钠和山梨酸钾高度敏感,尤其是酪丁酸梭菌(Clostridium tyrobutyricum)或副干酪乳杆菌(Lactobacillus paracasei),具有已知的抗炎特性,与具有促炎或致大肠杆菌特性的粪肠球菌或多形拟杆菌相比,对这三种防腐剂更敏感。
减轻食品添加剂对身体损害的一些建议
•选择天然食物:尽量选择天然食物,例如新鲜水果、蔬菜、全谷物和未经加工的肉类。这些食物通常不含添加剂。
•阅读食品标签:在购买加工食品时,仔细阅读食品标签。避免购买添加剂含量较高的食品,特别是那些含有大量人工色素和防腐剂的食品。
•自制食物:尽量选择自制食物,这样可以控制所使用的成分和添加剂的量。自制食物可以使用新鲜的食材,并尝试使用天然的调味料来增添风味。
•限制加工食品摄入量:减少加工食品的摄入量,特别是那些高度加工和包装的食品。这些食品通常含有更多的添加剂。
•多样化饮食:保持饮食的多样性,摄入各种不同类型的食物。这样可以减少对某一种食品及其潜在添加剂的过度依赖。
需要注意的是,并非所有的食品添加剂都对每个人都会产生负面影响。食品添加剂经过严格的监管和安全评估,以确保在合理摄入量下的安全性。
然而,对于敏感人群来说,或在过量摄入的情况下,某些食品添加剂可能会引起问题。因此,适度和平衡地摄入食品添加剂是很重要的。
越来越多的研究调查肠道微生物群与食品添加剂之间的相互作用,在总结当前研究中收集的信息后,我们得出结论:食品添加剂对肠道微生物群和肠道稳态产生多种影响,这可能与肠道炎症的发病和进展有关。
食品添加剂显著介导细菌功能的改变。总而言之,安赛蜜、三氯蔗糖和糖精等甜味剂可能通过提高细菌炎症潜力而诱发或加剧结肠炎。
羧甲基纤维素和聚山梨酯80等乳化剂被认为会改变肠道微生物群的多样性并增加细菌的侵入,从而对肠道健康有害。
食品着色剂的安全性应重新评估,因为其会引发肠道紊乱和菌群失调;然而,多元醇似乎通过改善肠道微生物的结构和功能而对肠道微生物群有益。
根据目前的证据和法规,必须谨慎考虑对炎症性肠病患者不利的食品添加剂,例如食品着色剂和乳化剂,包括羧甲基纤维素和聚山梨酯80。
尽管研究显示食品添加剂对肠道微生物组和肠道炎症有不同的影响,但将体外或动物模型中获得的相同结果归因于人类是不可行的。因此,未来的研究应该基于生物相关模型来复制人类的生理条件。
总之,需要更多的研究来阐明食品添加剂、肠道微生物群和人体健康之间的关系,并了解后代由于当代人的消费习惯而可能面临的炎症性肠病风险。
相关阅读:
你的焦虑可能与食品添加剂有关,警惕食品添加剂引起的微生物群变化
肠道微生物群与健康:探究发酵食品、饮食方式、益生菌和后生元的影响
主要参考文献
Zhou X, Qiao K, Wu H, Zhang Y. The Impact of Food Additives on the Abundance and Composition of Gut Microbiota. Molecules. 2023 Jan 7;28(2):631.
Rinninella E, Cintoni M, Raoul P, Gasbarrini A, Mele MC. Food Additives, Gut Microbiota, and Irritable Bowel Syndrome: A Hidden Track. Int J Environ Res Public Health. 2020 Nov 27;17(23):8816.
Tan H, Nie S. Functional hydrocolloids, gut microbiota and health: picking food additives for personalized nutrition. FEMS Microbiol Rev. 2021 Aug 17;45(4):fuaa065.
Liu C, Zhan S, Tian Z, Li N, Li T, Wu D, Zeng Z, Zhuang X. Food Additives Associated with Gut Microbiota Alterations in Inflammatory Bowel Disease: Friends or Enemies? Nutrients. 2022 Jul 25;14(15):3049.
Del Pozo S, Gómez-Martínez S, Díaz LE, Nova E, Urrialde R, Marcos A. Potential Effects of Sucralose and Saccharin on Gut Microbiota: A Review. Nutrients. 2022 Apr 18;14(8):1682.
Ravash N, Peighambardoust SH, Soltanzadeh M, Pateiro M, Lorenzo JM. Impact of high-pressure treatment on casein micelles, whey proteins, fat globules and enzymes activity in dairy products: a review. Crit Rev Food Sci Nutr. 2022;62(11):2888-2908.
Laudisi F, Stolfi C, Monteleone G. Impact of Food Additives on Gut Homeostasis. Nutrients. 2019 Oct 1;11(10):2334.
Abiega-Franyutti P, Freyre-Fonseca V. Chronic consumption of food-additives lead to changes via microbiota gut-brain axis. Toxicology. 2021 Dec;464:153001.