-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
人类口腔微生物组是一个微生物密集、化学信号持续变化的生态系统。每天刷牙、漱口,背后都有数以百亿计的微生物在牙面、舌背和牙龈沟“分工协作”。它们争夺营养、彼此发送信号,也共同搭建生物膜。不同微生物之间的竞争与协作共同塑造群落结构,并影响宿主健康。
当长期高糖饮食、清洁不足或反复炎症,改变的不仅是单一细菌的数量,更是整个微生物群落的关系网络:多样性下降,变形链球菌、牙龈卟啉单胞菌等潜在致病菌占据优势,而维持稳态的共生链球菌、Rothia 和 Actinomyces 则受到竞争减少。龋齿、牙周炎和牙龈炎等疾病已影响至少数十亿人,口腔微生物群还可能与心血管疾病和神经退行性疾病相关。
究竟是什么让口腔微生物群落从“相安无事”转向“持续失衡”?答案可能不只藏在单一菌群里,也藏在微生物制造的天然产物中。宏基因组研究显示,口腔微生物携带丰富的生物合成基因簇(BGCs),具有生产多样天然产物的巨大潜力。
这些代谢物正被逐渐视为介导微生物相互作用的关键媒介,许多口腔 BGC 与健康或疾病状态相关。它们能够调节细菌附着、生物膜、竞争、铁获取、氧化应激和宿主免疫。研究已在口腔中发现数千至上万个 BGC,且部分基因簇在健康、龋齿和牙周炎状态之间存在差异。
本文将聚焦结构复杂、合成代价较高的非核糖体肽(NRP)和多聚酮(PK),从 mutanofactin、mutanocyclin、mutanobactin、salivabactin 和 enterobactin 出发,追踪它们如何塑造口腔群落,再转向尚未揭示的 BGC 及其调控机制。我们也将进一步追问:口腔菌群检测能否从“检测到哪些菌”,走向“哪些功能正在表达、哪些化学变化正在发生”?
口腔微生物的基因中存在大量能够生产这些化学物质的“基因生产线”,所以研究这些基因簇,有助于理解口腔疾病是如何发生和持续的,也可能帮助发现新的药物或治疗线索。
口腔微生物群是一个持续通过化学互作进行适应的动态共同体,维系着口腔健康与疾病之间的微妙平衡。龋齿、牙周炎与牙龈炎等口腔疾病在全球极为常见,估计至少影响着数十亿人。
近年来,口腔微生物群组成还与心血管及神经退行性疾病等系统性疾病相关,这进一步突显了理解其生化影响的必要性。
口腔疾病通常与局部菌群失衡相关
口腔疾病通常与局部菌群失衡相关:微生物多样性降低,而变形链球菌(Streptococcus mutans)和牙龈卟啉单胞菌(Porphyromonas gingivalis)等潜在致病类群占优势。
相较之下,健康口腔往往具有更丰富且更稳定的共生链球菌群,以及罗氏菌(Rothia)和放线菌(Actinomyces)等。它们分别定植于牙齿表面、舌背与龈沟等不同生态位,并通过形成结构化生物膜而发挥保护或致病作用。高糖饮食、宿主炎症反应及遗传易感性等因素都可能打破这种平衡。
口腔天然产物是致病的关键因子
尽管已广泛研究疾病过程中菌群组成的变化,但群落如何在生化层面转向致病性优势状态的机制仍未明晰。天然产物或特定代谢物是细菌用来调控生长、行为与群落结构的关键小分子。这些分子可为阐明微生物失衡的化学驱动因素以及疾病进展中的关键环节提供路径。
按生物合成来源,天然产物通常包括:多聚酮(PK)、非核糖体肽(NRP)、核糖体合成并经翻译后修饰的肽(RiPP)、萜类、糖类、生物碱、杂合分子等,另外还有一些由基础代谢“衍生出来”的小分子。
要合成某一类天然产物,细菌通常需要一整套相关基因协同工作:这些基因常常会和调控、运输和自我保护(避免被自己产物伤害)等基因一起聚在染色体上的某个区域,形成生物合成基因簇(BGCs)。
注:之所以能用计算方法去找这些“基因包”,是因为在 BGC 中常能观察到一些典型“合成机器”——例如PKS(多聚酮合成酶)、NRPS(非核糖体肽合成酶)和萜烯合酶等线索;把这些信息和 DNA 序列一起分析,就能预测可能存在的 BGC。
★ 健康、龋齿与牙周炎状态下的BGC差异显著
研究者已经在大量口腔细菌基因组与宏基因组数据中系统挖掘到了 BGC 的化学潜力。比如,对461个口腔细菌基因组进行绘图,发现近 5000 个 BGC,并且健康、龋齿和牙周炎三种状态下的 BGC 存在明显差异。
口腔微生物群中包含着多种多样的细菌基因簇
编辑
doi: 10.1128/mBio.00321-19.
进一步在唾液和牙菌斑宏基因组中,对牙周炎患者与健康对照进行比较,识别出超过10700个 BGC。从健康与龋齿来源的宏基因组中识别约 4500 个 BGC,其中将近一半在健康与龋齿的宏转录组数据中呈现显著差异表达。
总体而言,这些结果提示:BGC 编码的“化学工具”很可能不仅参与维持口腔生态稳态,也可能在疾病发生发展过程中起到推动作用。
口腔代谢物也能通过多种方式影响宿主和菌群
至于口腔代谢物,已有研究较清楚地描述了一些“典型分子”,例如短链脂肪酸、氨基酸分解产物、挥发性硫化物和细菌素等。
它们可能通过多种方式影响宿主与菌群:例如刺激炎症、削弱组织结构;同时也能改变局部环境,让某些细菌更容易生存。部分代谢物还能像“窄谱抗菌剂”一样,只针对特定竞争者,帮助优势菌更稳地占据生态位。
相比之下,结构更复杂、合成成本更高的 NRP 和 PK 类天然产物,目前仍缺少像“常见代谢物”那样的系统整合研究。原因之一是它们通常需要更庞大的基因组装(对应更大的 BGC),代谢负担也更高,因此这些分子往往更可能承载更突出、更关键的进化与生态功能。
口腔天然产物和口腔代谢物有什么区别?
口腔产生的天然产物和口腔代谢物都可以是细菌分泌/产生的“小分子”,但在研究上侧重点不同:
1)侧重点不同
口腔代谢物:更偏“代谢产物/末端分子”的概念,通常指在口腔环境中实际被检测到的代谢小分子(例如通过代谢组学识别到的酸类、挥发性硫化物、氨基酸分解产物等)。
口腔天然产物:更偏“生物合成来源”的概念,通常指由微生物(或共生体)通过专门的生物合成通路(常见为 BGC)产出的次级代谢类小分子,常结构更复杂、更具“化学武器/信号分子”属性。
2)生成机制通常不同
天然产物往往对应明确的合成体系:例如 PK、NRP、RiPP、萜类等,背后常有成簇的基因(BGC)与关键酶(如 PKS、NRPS、萜烯合酶)。
代谢物更多反映“基础代谢+环境适应”的结果:糖酵解、氨基酸代谢、脂代谢以及厌氧发酵等都会产生大量代谢终产物,不一定需要典型 BGC。
简单比喻:代谢物更像“日常加工后的产物清单”;天然产物更像“特定工厂按配方定制的功能性化学品”。
3)结构复杂度与功能定位
天然产物通常结构更复杂、合成代价更高,常与竞争/协作、生态位塑造、抗性或抑菌等功能相关(当然也有例外)。
代谢物结构相对更“基础”,功能可能同样重要,但更常体现为改变pH、引发炎症、影响营养环境、产生气味/刺激性等。
4)是否有重叠?
有
现实中一些天然产物也会在代谢物检测中出现;但许多代谢物可能不被归类为“天然产物”,因为它们并非来自典型 BGC 的次级代谢体系,或结构/机制不满足“天然产物”研究框架。
目前得到充分表征的口腔多聚酮(PK)、非核糖体肽(NRP)及其杂合代谢物,绝大多数来自革兰阳性兼性厌氧菌——变形链球菌(Streptococcus mutans)。它虽以形成致龋生物膜著称,却也是 NRP、PK 与 RiPP 等生物活性天然产物的丰富来源。
非核糖体肽类物质以及多聚酮化合物
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下表概览本节的六类代表性分子;随后将沿“分子如何改变群落”的顺序展开。
编辑
Mutanofactin —促进口腔早期定植的天然产物
2021 年,研究人员发现mutanofactins——一类由少数变形链球菌临床分离株产生、能促进生物膜形成的脂肽。
该家族包含五种两亲性脂肽,由 N-酰基脂肪酸部分连接短肽骨架。主要代谢物 Muf-697 的末端 PK 部分含噻唑取代基;Muf-458、-539、-541 与 -607 则具有不同末端基团。机制研究表明,Muf-697 可非特异性结合于变形链球菌细胞表面,提高表面疏水性,并通过物理化学作用促进附着和后续生物膜形成。
其生物合成呈典型装配线模式:先以十碳-2,4,6,8-四烯酰链起始修饰 L-苯丙氨酸,再经两个 NRPS 模块与两个 PKS 模块延伸;新生链最终在缩合域介导的罕见末端酯化中引入 L-乳酸并释放,形成 Muf-697。装配线不同步骤的水解会产生多种旁路产物。
mutanofactin的生物合成及促进生物膜形成的能力
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanofactins能促进链球菌等形成生物膜并定植与口腔
在完成 mutanofactins 全合成并开展微生物学分析后发现,Muf-697 能促进变形链球菌及戈登链球菌、口腔链球菌等早期定植者形成生物膜,对具核梭杆菌与不动杆菌的影响则很小,提示它对早期群落构建具有选择性。
尤为关键的是,该分子能够使黏蛋白包被表面发生膨胀,从而帮助变形链球菌附着于原本难以定植的黏蛋白层。muf BGC 在早期指数生长期表达达到峰值,恰好对应初始附着的关键窗口,也支持其在多微生物生物膜建立中的作用。
Mutanocyclin与Reutericyclin —抗菌前体到功能再利用的天然产物
含四元酸(tetramic acid)的天然产物以 2,4-吡咯烷二酮核心为特征,在多种生态位中可表现抗菌、抗真菌和细胞毒性。
★ Reutericyclins具有抗菌性,还能减轻体重增长
Reutericyclins 就是一种此类化合物,最初发现于肠道微生物罗伊氏乳杆菌,由混合型 NRPS–PKS 基因簇编码,包含 A–C 三种 N 连接脂肪酰侧链长度不同的同系物。它们是强效质子离子载体,可在纳摩尔浓度破坏广谱革兰阳性菌的跨膜 pH 梯度;在小鼠中还被报道可减轻利培酮相关体重增加并引起与瘦型相关的微生物组变化。
mutanocyclin的生物合成及其生物活性
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanocyclin影响免疫反应、降低变形链球菌丰度
同源 muc 基因簇在一些(约14%)已测序的变形链球菌里能找到。研究显示,带有 muc 的菌株通常不主要产出 reutericyclin,而是生成缺少脂酰侧链的 mutanocyclin。
这条脂酰侧链很关键:当它缺失时,mutanocyclin 的抑菌/杀菌能力会明显减弱——它往往只对少数口腔细菌表现出较弱作用;而 reutericyclin 则更“强势”,能在实验性的合成生物膜里显著降低接近 40 个口腔细菌类群的丰度,从而明显改变群落结构。少数仍携带 muc 的菌株也能产生 reutericyclin,但其产生量通常比 mutanocyclin 低约一个数量级。
mutanocyclin 可能被“再利用”于不同生态功能:它不仅可能影响免疫反应或屏障环境(如在 Matrigel 栓实验中降低白细胞浸润),还可能通过影响信号通路(例如调节 PKA 亚基 Tpk2 及下游 SFL1)来抑制白色念珠菌的菌丝形成。但它对生态的作用并非单向:近期多物种生物膜研究表明,mutanocyclin 可能会降低变形链球菌丰度,同时也能增强戈登链球菌、血链球菌等对变形链球菌的拮抗效应。也就是说,它更像是在塑造“群落博弈”的规则,而不是单纯地只杀一种细菌。
在机制上,reutericyclin 和 mutanocyclin都来自同一条“混合装配线”:NRPS–PKS共同参与合成,先形成带有吡咯烷-2,4-二酮核心的骨架。接着,reutericyclin的前体会先被氨基酸酰化加上特定修饰;然后由 mucF 编码的脱酰化酶把脂酰基等部分“去掉”,生成 mutanocyclin。
Mutanobactin —结构多样、功能多面的天然产物
在已表征的变形链球菌特殊代谢物中,mutanobactin 是功能谱最广的一类。对应 mub BGC 在超过 30% 的变形链球菌基因组中存在,显示出潜在的进化优势。此前研究已关注其结构、对白色念珠菌菌丝形成的抑制,以及与氧化应激耐受相关的性质。
注:迄今已发现逾 50 种同系物。Mub-A 至 Mub-D 最丰富且结构已解析。Mub-A 至 Mub-C 含有罕见的 1,4-噻氮杂环庚烷环;Mub-D 不具该结构,而有 7-甲基取代。其大环结构源于具有一定“宽容性”的 NRPS–PKS 装配线:末端还原域释放高反应性线性醛中间体,后者自发进行非酶促大环化,产生所观察到的化学多样性。
★ Mutanobactin高浓度下能抑制戈登链球菌、不动杆菌等
Mutanobactin的作用不仅限于抗氧化耐受。Mub-A、Mub-B 和 Mub-D 可抑制白色念珠菌的菌丝形成,并下调与毒力相关的 ECE1 和 SAP2;其中半数最大抑制浓度约为 5.3 μM。去除脂质侧链的截短类似物活性显著降低,说明脂质结构域至关重要。
较高浓度(通常 >50 μM)下,它们还可对戈登链球菌、不动杆菌及口腔放线菌产生抗菌作用。
★ Mutanobactin 也可能调节宿主反应
Mub-B 被报道可改变多种促炎细胞因子的水平;Mub-D 在约 5 μM 时可促进人牙髓干细胞与人骨髓干细胞的增殖和分化。
综合来看,这类分子可能同时参与变形链球菌毒力与宿主互作。但其在天然多物种口腔群落以及真实生理浓度下的具体作用仍需进一步研究。
Mutanoclumpin —协同驱动生物膜与龋齿的天然产物
最新表征的变形链球菌 NRP–PK 杂合 BGC 编码 mutanoclumpins。该途径产生两种结构不同的代谢物 MC-584 与 MC-586;二者在可能由末端还原酶域催化的最终大环化步骤分叉。
★ mutanoclumpins可能是变形链球菌致龋关键
人牙菌斑的宏基因组与宏转录组分析显示,mutanoclumpin BGC(mcg)与龋齿相关;更值得注意的是,mcg 表达与龋齿相关样本的关联强于变形链球菌自身的 16S 丰度。这一发现强调,功能活性有时比物种是否存在更能反映疾病状态。
MC-584 与 MC-586 需要共同存在,才能恢复 mcg 敲除突变体的生物膜形成,显示出双代谢物协同机制。两种化合物分别与变形链球菌细胞表面结合,并诱导不同的多细胞形态,共同构成生物膜结构。
该研究进一步提示:理解口腔致病性,不能只追踪单一菌或单一代谢物,也应解析由 NRPS/PKS 产生的生物膜代谢物之间的协调作用。
Salivabactin:—源自口腔益生菌产生的天然产物
Salivabactin 由人源口腔益生菌唾液链球菌 K12(Streptococcus salivarius K12)产生,与其知名的抗菌 RiPP 类 salivaricins 一同构成抗菌武器库;相关 BGC 均位于 pSsK12 巨型质粒上。
★ Salivabactin对多种革兰阳性病原菌具有活性
该分子在体内外对多种革兰阳性病原体表现强效活性,尤其针对化脓性链球菌(A 组链球菌,GAS)。体外对 GAS 的 MIC 约为 2 μg/mL,杀菌效力可与青霉素 G相当;它还抑制肺炎链球菌、变形链球菌和金黄色葡萄球菌。
唾液分泌素的生物合成、调控机制
编辑
doi: 10.1146/annurev-biochem-051024-050248.
在 GAS 坏死性肌炎小鼠肌内感染模型中,纯化 salivabactin 的保护效应与同剂量青霉素 G对照相当。尽管其体外对革兰阴性菌无活性,在大肠杆菌异源生产时却显示明显细胞毒性,提示跨膜转运可能限制了其对革兰阴性菌的抗生素活性。
注:salivabactin 由 sar 基因簇编码的 trans-酰基转移酶型 PKS–NRPS 杂合装配线合成,核心酶包括 SarD、SarE、SarF、SarG、SarH 和 SarJ。异源表达及纯化酶体外重构证明,这六种酶构成合成所需的最小机器。其末端硫酯酶域属于新亚家族,可连续催化水解、脱羧和 β-羟基消除,生成决定其独特结构的末端二烯部分。复杂的合成机制体现了唾液链球菌 K12 作为多功能抗生素生产者的潜力。
Enterobactin —一种可作为高效铁载体的天然产物
黏液罗氏菌(Rothia mucilaginosa)是常见口腔成员,近年被证实为首个产生儿茶酚型铁载体 enterobactin 的口腔共生菌;此前,人们认为该分子主要局限于致病性肠道细菌。Enterobactin是自然界已知铁亲和力最高的分子之一。这种超高亲和力使细菌即使在宿主以封存铁为防御策略时也能获取铁,因此与微生物竞争和宿主营养免疫调节密切相关。
★ 罗氏菌产生的enterobactin特异性影响不同链球菌
基因组学、代谢组学和核磁共振分析共同证实:黏液罗氏菌 ATCC25296 可在营养受限条件下通过 NRPS 途径合成 enterobactin。尽管其 BGC 与大肠杆菌同源性很低,仅 NRPS 基因与大肠杆菌 EntE–EntB 融合蛋白有约 41% 相似性,但 NMR 显示口腔来源产物保留典型结构——由2,3-二羟基苯甲酰-L-丝氨酸构成的环状三聚酯。
类似 BGC 还存在于龋齿罗氏菌(Rothia dentocariosa)与空气罗氏菌(Rothia aeria),提示该途径在口腔罗氏菌属中较广泛。初步研究显示,黏液罗氏菌来源 enterobactin 可间接对抗致龋变形链球菌与致病金黄色葡萄球菌,同时又对共生菌产生高度物种特异性作用:唾液链球菌与戈登链球菌受益,口腔链球菌生长降低,而血链球菌不受影响。
小编的话
本节围绕变形链球菌及口腔共生菌的 NRPS–PKS 杂合代谢物展开:mutanofactins 用于“早期粘附与生物膜形成”,mutanocyclin/reutericyclin 则在“抗菌与免疫调节”之间切换,而 mutanobactin、mutanoclumpin 进一步指向更复杂的功能协同。
值得注意的是,许多现象并不完全由单一菌种决定,反而更受关键代谢物的表达水平牵引:当 BGC 活性与龋齿相关性强于 16S 丰度时,疾病更像是被代谢网络驱动而非单纯被物种“占领”。小编认为,未来口腔致病机制研究不应只追踪“谁来了”,还要追问“它在什么营养与生态压力下,用了哪些物质”。这样才能真正理解天然产物如何把共生转化为致病。
目前我们已经弄清并能“点名”的口腔 NRP/PK 天然产物其实只是很小的一部分。原因在于:口腔里很多微生物的基因组体量不大,通常只有约2–3 Mbp;而一些天然产物“生产能手”(如链霉菌、伯克霍尔德菌)常见基因组能达到约 7 Mbp。基因组更小,往往意味着潜在的 BGC(生物合成基因簇) 可能也相对更少。
不过,即便在这种“基因空间更紧”的情况下,NRP/PK 的基因簇仍然占了不小的比重,这说明它们很可能并不是多余的装饰品,而是对生存与适应很重要、也很有进化价值。
基于下面对变形链球菌、罗氏菌属、具核梭杆菌这三类口腔关键菌群的梳理,我们可以得到一个更清晰的认识:口腔天然产物并不只是由少数“已经被命名的致龋分子”构成,而更像是一套由许多仍在等待解析的 NRPS/PKS 基因簇 共同组成的化学工具箱;这些产物会在不同的生态位、不同的时间节点被“启动”,从而一起塑造口腔群落的状态。
变形链球菌:未表征的调控潜能
除前述已知代谢物外,变形链球菌还携带多个未表征的 NRPS/PKS BGC。代表性例子包括 mutantioxidin BGC(mao)和 BGC2。
★ mao有助于变性链球菌的氧化应激耐受
2010 年对 UA140 和 MT4653 菌株的研究发现,mao 编码一种与氧化应激耐受相关的黄色色素。
mao 约存在于20% 的变形链球菌分离株,并在植物相关乳酸乳球菌及鼻腔定植表皮葡萄球菌中发现同源 BGC。破坏 mao 的变形链球菌突变株暴露于 O2 或 H2O2 时滞后期延长、倍增变慢,提示 mutantioxidin 与氧化应激耐受有关;乳酸乳球菌 KF147 同源 BGC 中 4′-磷酸泛酰巯基乙胺转移酶基因缺失也会显著降低细胞在氧化压力下的存活能力。
★ BGC2可能参与生物膜形成后的功能调控
BGC2 也是一套“基因配方”,由18个基因协作组成,属于 NRPS–PKS 这种混合型合成系统,且常常和 mutanofactin 的 BGC1 同时存在。两者的启动时间不一样:BGC1 更偏向于在细菌刚开始“贴上去”形成附着时就表达;而 BGC2 往往在生物膜逐步建立、进入后期时表达明显增强。
不过,研究者通过敲除 BGC2 发现,生物膜的总体结构和稳定性并没有明显改变。这提示 BGC2 可能并不只是“搭建生物膜本身”的关键零件,而更可能参与生物膜形成后的某些调控或功能细节。
代表性未表征的非核糖体肽类及聚酮类化合物BGCs
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下一步就是弄清 BGC2 主要产物是什么,从而更好理解它究竟在发挥什么作用,以及为什么在同一菌株里 BGC1 与 BGC2 会一起共存?
Rothia:与健康相关、蕴藏着丰富的天然产物潜能
罗氏菌属(Rothia)是人类口腔与呼吸道常见的非运动性、不产孢、革兰阳性球杆菌,以兼性厌氧方式生长。口腔中较常见的三种为空气罗氏菌(R.aeria)、龋齿罗氏菌(R.dentocariosa)和黏液罗氏菌(R.mucilaginosa):前两者多见于牙菌斑,黏液罗氏菌则是舌背微生物群的重要成员,可形成广泛斑块。
尽管 Rothia 可在临床感染中作为机会性病原体出现,但它通常是健康口腔的关键组成,丰度往往与牙周病负相关;黏液罗氏菌和空气罗氏菌常见于低龋人群,而龋齿罗氏菌则检出于高龋人群。空气罗氏菌还被提出可作为还原硝酸盐的益生菌,与硝酸盐益生元组合用于牙周炎干预。
★ Rothia 潜在天然产物助力口腔稳态
基因组挖掘揭示其天然产物能力远比预期丰富。对 155 个 Rothia 基因组的比较研究发现,80% 至少携带一个 BGC,并将 NRP BGC 分为四个家族。其中一个主要家族是缬氨霉素抗生素 BGC;另一类为见于人源黏液、龋齿和空气罗氏菌的 enterobactin BGC。
研究还发现一种在 Rothia nasisuis与Rothia nasimurium 中常见的新型 enterobactin-like NRP BGC:它虽与 enterobactin BGC 共享保守基因,却编码不同 NRPS 核心,因而被推测产生结构不同的金属结合代谢物以促进定植。
此外,一株来自人类口咽的龋齿罗氏菌对致病奈瑟菌具有明确抗菌活性,其基因组包含六个 BGC,包括 enterobactin BGC 与一个 II 型 PKS BGC。这些线索表明,NRPS/PKS 可能是 Rothia 适应口腔微环境的重要组成;其编码代谢物的结构解析,有望阐明微生物—微生物与微生物—宿主互作的分子基础。
具核梭杆菌:生物膜“桥梁菌”的新兴合成潜力
具核梭杆菌(Fusobacterium nucleatum)既是人类口腔常见成员,也与牙周疾病相关,是一种革兰阴性、长杆状厌氧菌。它在口腔生物膜中扮演“桥梁菌”:连接早期和晚期定植者,促进生物膜成熟与稳定。
★ 健康相关梭杆菌亚种的NRPS产物潜能
它可与链球菌、放线菌等早期定植者,与韦荣菌、放线杆菌、拟杆菌、二氧化碳嗜纤维菌(Capnocytophaga)、卟啉单胞菌等晚期定植者,以及白色念珠菌共聚集。不同亚种与健康/疾病的关联也不相同:虽然F.nuclearum的亚种集中在牙周病的部位,但F.polymorphum和F.vincentii的亚种通常存在于健康的口腔中。
其遗传与代谢多样性仍刚开始被解析。泛基因组研究显示,天然产物 BGC,尤其 NRPS 编码簇,存在亚种特异性分布:NRPS 簇 1 在各亚种中高度保守,而另一个 NRPS 簇 2 则同时存在于多形亚种与文森特亚种。鉴于这两种亚种在健康口腔中的常见性,解析其 NRPS 产物及功能,可能为理解其潜在健康贡献带来帮助。
小编提醒
现有研究表明,口腔微生物虽因基因组较小而携带的 BGC 数量有限,但 NRPS/PKS 基因簇仍在多个关键菌群中稳定存在,说明其产物可能具有重要的生态价值。
变形链球菌的 mao 与 BGC2 分别可能参与氧化应激耐受和生物膜后期调控;罗氏菌的相关基因簇可能通过金属获取、抑制竞争菌等方式促进定植并维持口腔稳态;具核梭杆菌中呈亚种特异性分布的 NRPS 簇,则可能与健康或疾病相关生态位的分化有关。
由此推测,口腔天然产物的作用并非局限于“抗菌”,而可能涉及应激防御、营养竞争、群落交流及宿主互作。未来应结合代谢组学、空间转录组学和基因敲除实验,明确这些基因簇在特定时间与微环境中的产物及功能,从而将“基因组潜力”真正转化为对口腔生态机制的理解。
与口腔菌群检测的潜在衔接:从“群落图谱”走向“功能假设”
这篇文章最重要的一点在于,把关注点从“哪些菌变多或变少”推进到“哪些功能正在被表达、哪些化学分子正在改变生态位”。因此,若将谷禾口腔菌群检测作为观察口腔微生态的入口,其结果可在不越过检测能力边界的前提下,被组织为以下逐层递进的解释框架。
编辑
具体而言,若检测结果提示变形链球菌相关生态位发生改变,可在研究层面提出与 mutanofactin、mutanocyclin、mutanobactin 或 mutanoclumpin 相关的生物膜形成、应激适应和跨物种互作假设;若罗氏菌相关类群处于值得关注的变化状态,则可进一步追问其铁获取与共生竞争的功能背景;而具核梭杆菌的亚种与功能簇分布,则可为“桥梁菌”如何参与群落成熟提供探索线索。这里的关键词是“提出假设”,而不是从物种丰度直接推断某一种代谢物的存在或疾病结论。
对检测解读而言,最有价值的实践并非把某一菌简单标记为“好”或“坏”,而是把样本置回生态网络:采样部位、龋齿/牙周状态、饮食与口腔环境、群落多样性、潜在功能、以及必要时的复测趋势,都应共同进入判断。与本文强调的多组学方向相一致,口腔菌群检测可作为一个初始“群落地图”;当研究或健康管理问题需要更强的功能证据时,再由宏基因组、宏转录组、靶向代谢组或空间成像逐层验证。
本文所呈现的并不是一张简单的“有益菌—有害菌”名单,而是一幅由分子互作编织而成的口腔生态图景。变形链球菌产生的 mutanofactin、mutanocyclin、mutanobactin 和 mutanoclumpins,可参与附着、生物膜构建、抗氧化与跨物种竞争;口腔益生菌唾液链球菌 K12产生的 salivabactin,展示了抗菌分子与 pH 环境、群体感应之间的精细配合;Rothia 产生的 enterobactin,则说明共生菌也能通过铁获取和物种特异性互作影响群落。NRP/PK 代谢物因此连接起生物膜、营养、竞争、宿主免疫与疾病表型,并可能借助 BGC 的水平转移和代谢“串话”跨越物种边界。
这也改变了我们理解口腔菌群检测的方式。一次检测看到的菌群丰度,更像是一张“群落地图”,它告诉我们哪些菌群可能在,却未必能说明谁正在表达功能、谁正在释放代谢物。对谷禾口腔菌群检测结果的解读,也应沿着这一思路推进:在物种组成之外,结合样本部位、临床表型与复测趋势;在检测能力允许时,再进一步关注 BGC、代谢组等功能证据。
当口腔健康被看作一个动态生态过程,成为连接群落结构、化学功能和时间变化的观察窗口。谷禾健康关注的,不只是“有哪些菌”,更是这些菌共同构成了怎样的微生态,以及它们可能参与哪些重要功能。依托长期积累的中国人群口腔与肠道菌群数据库,16S检测基础上,结合菌群结构和潜在功能代谢进行综合解读,帮助用户避免只盯着单个“有益菌”或“有害菌”,而是从整体生态和动态变化的角度理解检测结果。
从口腔到肠道,菌群检测的意义正在从“看丰度”走向“看生态、看功能、看趋势”。未来,随着代谢组学、BGC分析、转录组和蛋白等技术的发展,我们将能够更深入地回答“谁在场、谁在发挥作用、产生了什么、如何影响健康”等问题。现阶段,谷禾希望通过更丰富的人群数据库、更规范的检测技术和更清晰的报告解读,为用户建立一扇认识自身微生态的窗口,让检测结果真正服务于长期、科学、个体化的健康管理。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Loop Yao M, Dai Y, Zhang W. Natural Products from the Oral Microbiome. Annu Rev Biochem. 2026 Jun;95(1):569-593.
Ma Z , Zuo T , Frey N , Rangrez AY. 2024 . A systematic framework for understanding the microbiome in human health and disease: from basic principles to clinical translation . Signal Transduct. Target. Ther. 9 ( 1 ): 237 10.1038/s41392-024-01946-6
Huttenhower C , Gevers D , Knight R , Abubucker S , Badger JH , et al. 2012 . Structure, function and diversity of the healthy human microbiome . Nature 486 ( 7402 ): 207 – 14 10.1038/nature11234
Gancz AS , Weyrich LS. 2023 . Studying ancient human oral microbiomes could yield insights into the evolutionary history of noncommunicable diseases . F1000Research . 12 : 109 10.12688/f1000research.129036.2
Jain N , Dutt U , Radenkov I , Jain S. 2024 . WHO’s global oral health status report 2022: actions, discussion and implementation . Oral Dis . 30 ( 2 ): 73 – 79 10.1111/odi.14516
Adil NA , Omo-Erigbe C , Yadav H , Jain S. 2025 . The oral–gut microbiome–brain axis in cognition . Microorganisms 13 ( 4 ): 814 10.3390/microorganisms13040814
Peng X , Cheng L , You Y , Tang C , Ren B , et al. 2022 . Oral microbiota in human systematic diseases . Int. J. Oral Sci. 14 ( 1 ): 14 10.1038/s41368-022-00163-7
Hajishengallis G , Lamont RJ , Koo H. 2023 . Oral polymicrobial communities: assembly, function, and impact on diseases . Cell Host Microbe 31 ( 4 ): 528 – 38 10.1016/j.chom.2023.02.009
谷禾健康
在人类与微生物的共生世界中,新的发现正在不断刷新我们对健康与疾病的认知。肠道、呼吸道、生殖道——这些看似熟悉的环境中,栖息着数量庞大却性质各异的细菌,它们有的温和共生,有的在特定条件下摇身一变成为病原菌。
本次谷禾报告更新,新增了多种具有代表性的潜在致病菌和机会性感染菌——从龋齿放线菌到医院相关耐药菌,从新生儿高危感染的GBS到隐秘的粘质沙雷氏菌——这些微生物不仅展示了复杂的生态角色,也折射出人体微环境的脆弱平衡。
我们希望通过科学、系统的解读,帮助读者理解这些菌群在健康和疾病之中的真实意义:哪些只是短暂停留的“旁观者”,哪些则可能成为引发炎症、感染乃至系统性疾病的“潜在危险信号”。这既是一次对微生物多样性的探索,也是一场关于精准健康管理的知识升级。
龋齿放线菌(Actinomyces odontolyticus)是一种革兰氏阳性、厌氧、非产孢、非运动性杆菌,最早于1958年从口腔龋齿中分离。它通常作为口腔、上消化道和泌尿生殖道的正常菌群存在,但在特定条件下可成为机会致病菌,导致多种感染。
1
基本信息
•形态特征:革兰氏阳性,细长分枝杆菌样,呈丝状。
•需氧情况:严格或微需氧厌氧菌。
•人体分布:人类口腔、咽部、胃肠道和泌尿生殖道的常驻菌群之一。
•特点:与其他放线菌(如A. israelii)类似,可形成肉芽肿样、慢性脓肿,有“硫磺颗粒”。当黏膜屏障受损(如牙科操作、外伤、免疫抑制)时,易由定植转为致病。
2
可能导致的疾病
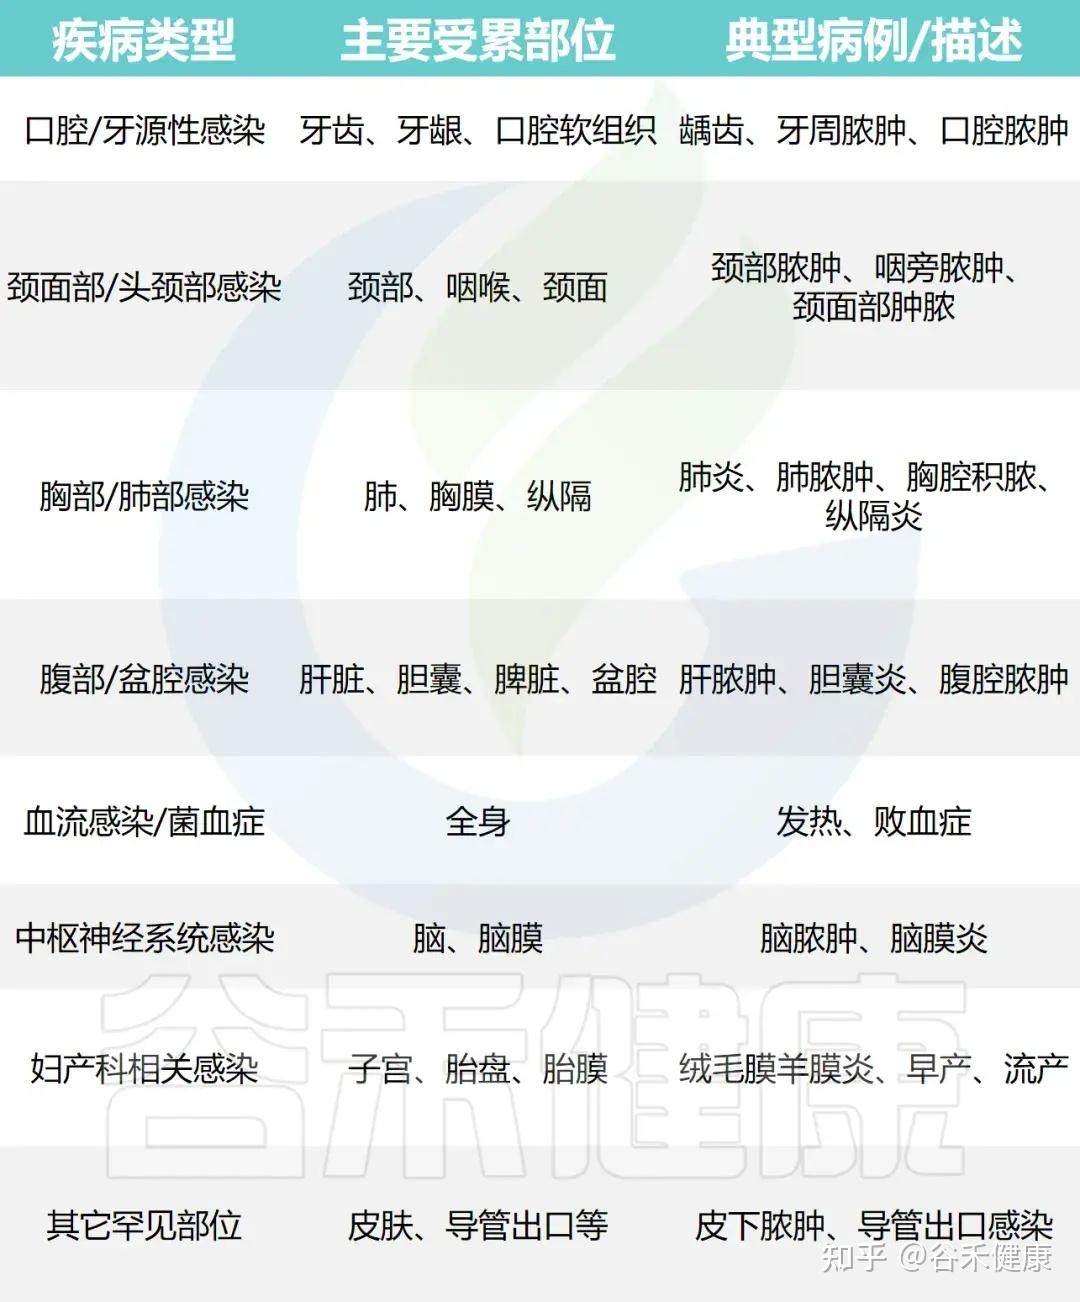
我们在下表中系统整理了由Actinomyces odontolyticus可能引起的各类疾病:
3
典型症状
•全身症状:患者可出现发热、乏力、体重减轻。局部出现慢性硬结,逐渐形成波动性脓肿,并可伴多发瘘管。脓液中常见黄白色“硫磺样颗粒”,实为菌落团。起病缓慢,虽少见明显全身中毒症状,但可长期低热、消耗,局部愈合不良。
•口腔/颈面部:牙痛、牙龈红肿、口腔脓肿、颈部肿胀。
•胸部/肺部:咳嗽、咳痰、呼吸困难、胸痛、胸腔积液。
•腹部/盆腔:腹痛、肝区压痛、腹部包块、女性可见盆腔炎症。
•中枢神经系统:头痛、意识障碍、神经功能缺损。
•皮肤/导管:脓性分泌物。
4
致病机理要点
•机会致病菌:Actinomyces odontolyticus通常在宿主免疫力下降或局部组织受损时,通过黏附并侵入受损的黏膜或牙龈组织,借此获得感染机会并逐步定植。
•在缺氧或厌氧条件下,该菌可迅速繁殖,形成致密的丝状菌丝团块。这些菌团被机体的肉芽组织所包绕,逐渐构成类似肉芽肿的慢性炎性病灶,使局部组织结构被破坏并持续扩展。
•随着感染进展,病原体可沿组织间隙缓慢向周围扩散,通过连续性扩展和瘘道形成进一步蔓延。由于这种蔓延方式不遵循正常的解剖间隙,病灶范围常远超出皮肤或黏膜表面肉眼可见的受累区域,导致诊断和治疗更加复杂。
5
在肠道里的意义
•这类放线菌本身就可以是口腔和消化道的共生菌之一,在粪便或肠道菌群中检出,并不罕见。多数情况下,仅仅检出不代表有病。
•还有部分研究显示,A.odontolyticus具备硝酸盐还原能力,可能影响口腔及肠道的亚硝酸盐水平,间接参与宿主的抗菌和血管舒张等生理过程 。
6
可能提示或潜在问题
•若在有腹腔感染、慢性脓肿、术后持续不愈的病例中,从腹腔脓液或病灶同时检出放线菌,才需要考虑:是否存在腹部放线菌病(如阑尾穿孔、肠穿孔后形成的慢性肉芽肿性炎症、瘘管等)。
•单纯在“肠道菌群报告”中出现,多半只是共生/或短暂存在,不必单独处理。
总结
A.odontolyticus虽为常见口腔定植菌,但在免疫低下或黏膜损伤时可引发多系统感染,临床表现多样,需高度警惕并结合多种检测手段早期诊断与干预。
摩氏摩根氏菌(Morganella morganii)是一种革兰氏阴性菌,兼性厌氧、杆状细菌,属于肠杆菌科,广泛存在于人类、哺乳动物、爬行动物肠道及环境中。
它通常作为肠道正常菌群存在,但在免疫力低下或特定条件下可成为机会致病菌,引发多种感染,且近年来耐药性和毒力增强,临床关注度显著提升。
1
基本信息
•分类:肠杆菌科,Morganella属,主要有M.morganii subsp. morganii和M.morganii subsp. sibonii 两个亚种。
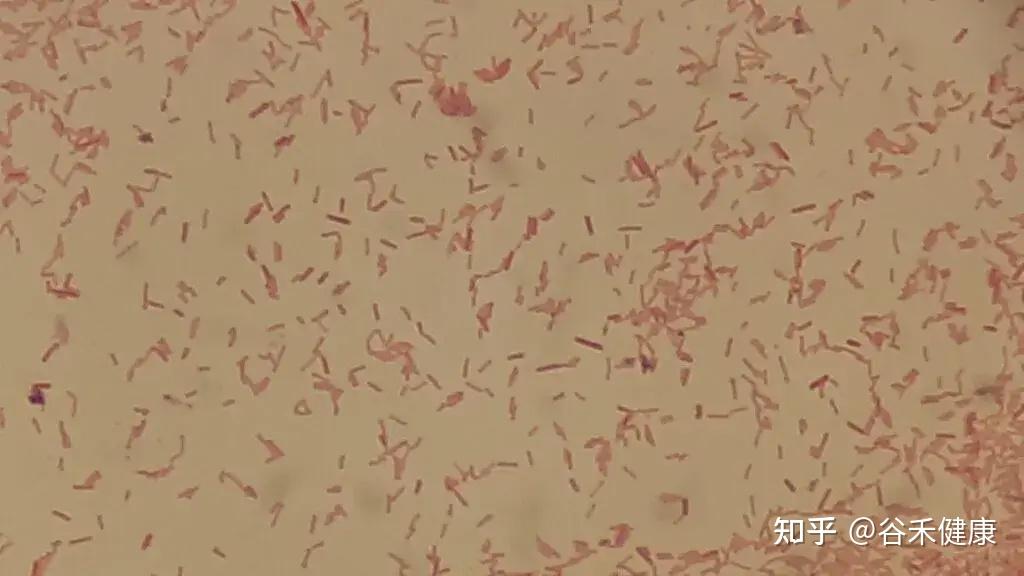
•生物学特点:无芽孢、运动性强、杆状、兼性厌氧,具强尿素酶活性,能分解尿素。
•生态分布:广泛分布于水体、土壤、动物及人类肠道。
•重要性:常为医院获得性感染的机会致病菌。
2
可能导致的疾病
M. morganii作为机会致病菌,能引发多种感染,常见于以下疾病:
•尿路感染(UTI):常见于留置导尿、结构异常者或免疫低下、老年人、儿童中。
•伤口及软组织感染:包括手术后伤口感染、蜂窝织炎、坏死性筋膜炎等。
•败血症/菌血症:可导致高死亡率,尤其在老年及有基础疾病患者中。
•腹腔及肝胆系统感染:如腹膜炎、肝脓肿、胆道感染。
•其他:脑脓肿、心内膜炎、骨髓炎、关节炎、绒毛膜羊膜炎、食物中毒(组胺中毒)等。
3
典型症状
M. morganii感染的临床表现多样,取决于感染部位和宿主状况,常见症状包括:
•尿路感染:尿频、尿急、尿痛、血尿、发热。
•伤口/软组织感染:局部红肿、疼痛、化脓、坏死、发热,严重时可进展为坏死性筋膜炎。
•败血症:高热、寒战、低血压、意识障碍,严重时可致多器官功能衰竭。
•腹腔感染:腹痛、腹胀、发热、黄疸等。
•其他部位感染:如脑脓肿可表现为头痛、神经功能障碍,心内膜炎可有心脏杂音、心衰表现。
4
致病机理要点
•多重耐药性:M.morganii具备多种耐药基因(如 blaNDM-1、qnrD1、blaKPC-2),对多类抗生素(包括碳青霉烯类、氨基糖苷类等)表现耐药,治疗难度大。
•毒力因子:包括溶血素、尿素酶、IgA 蛋白酶、鞭毛、黏附素等,增强其致病性和组织侵袭能力。
•高危人群:老年人、免疫抑制者、慢性基础病患者、住院及手术后患者感染风险更高,且病死率较高
5
健康风险
•基因毒性与肿瘤风险:
M. morganii 可产生新型基因毒素“indolimines”,能直接损伤肠上皮细胞DNA,增加肠道通透性,并在动物模型中加重结肠肿瘤负担,提示其可能促进结直肠癌的发生与进展。
•炎症与免疫失调
该菌与炎症因子(如IL-6、IL-8、TNF-α)表达升高相关,且与短链脂肪酸水平降低有关,可能加剧肠道炎症和免疫功能障碍。在HIV感染者中,M.morganii丰度升高与抗逆转录病毒治疗后免疫重建不全密切相关。
•精神健康影响
研究发现M. morganii产生的特殊磷脂可激活免疫反应,诱导炎症,且其丰度与抑郁症发病风险增加有关。
6
在肠道里的意义
•属于肠杆菌科,本来就可以是肠道正常菌群的一部分。
•但它也是典型的机会致病菌+容易耐药的医院相关菌。
7
可能提示或潜在问题
•菌群失衡/抗生素压力下(特别是住院、用广谱抗生素的人):Morganella 可能扩增,成为潜在的感染源,例如尿路感染(尤其有导尿管者)、伤口感染、腹腔感染、菌血症、败血症(免疫抑制或重症患者)。
•从菌群学角度:此类条件致病菌大量增多,常提示肠道菌群多样性下降、共生菌被压制。
•什么时候要警惕:在ICU、肿瘤或老年患者中,若粪便或直肠拭子多次检出且丰度较高,并伴发热而无明确感染灶,应警惕其作为潜在的“肠源性血流或尿路感染”病原库,对经验性抗生素选择具有重要参考意义。
总结
M. morganii 虽为肠道常见菌,但其基因毒性、炎症促进、耐药性及与多种疾病的关联,使其成为值得高度警惕的潜在健康威胁。
无乳链球菌(Streptococcus agalactiae)(又称B群链球菌,GBS)是一种革兰氏阳性球菌,广泛存在于人类肠道和泌尿生殖道的正常菌群中,但在特定条件下可转变为重要的人类和动物病原体,导致多种严重感染。
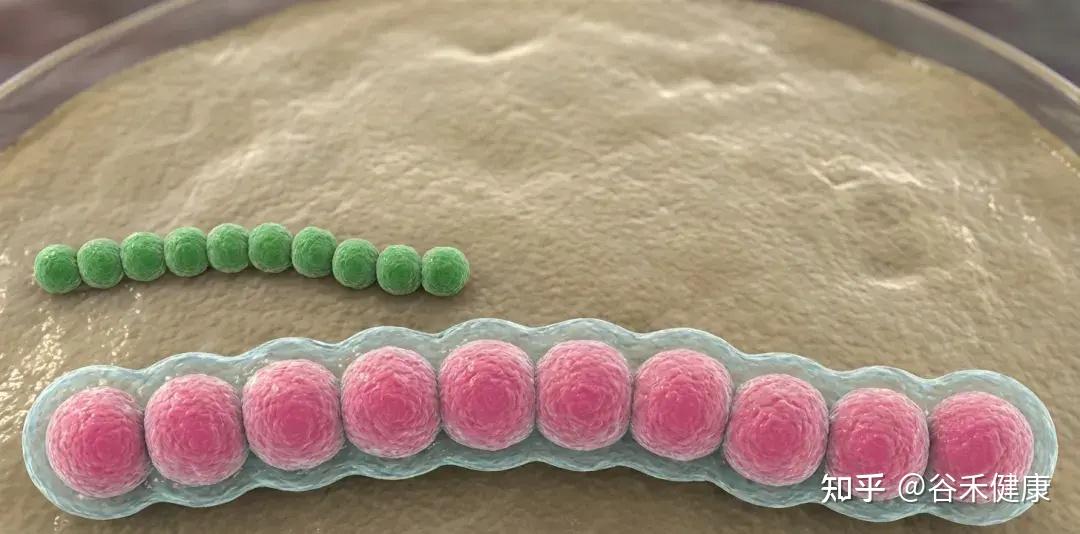
1
基本信息
•革兰染色:革兰阳性球菌,成链状排列。
•溶血性:多为β溶血。
•分类:Lancefield B 群 → 常称“B 族链球菌(GBS)”目前已鉴定出10种血清型(Ia、Ib、II-IX),不同地区和宿主的流行型别有所差异。
•自然栖息地:成人肠道和女性阴道、下生殖道常见定植菌。
2
可能导致的疾病
•新生儿感染(核心重点):
-早发型:新生儿早期败血症、肺炎;
-晚发型:脑膜炎、败血症。
•妇产科感染:
产褥感染、绒毛膜羊膜炎、尿路感染。
•成人侵袭性感染:
皮肤软组织感染、尿路感染、菌血症、肺炎、骨髓炎等,尤其是糖尿病、老年或免疫低下者。
3
典型症状
•新生儿早发型:出生后数小时~数天内出现:呼吸急促、发绀、喂养困难、发热或体温不稳、嗜睡,可进展为呼吸窘迫、休克。
•新生儿脑膜炎:惊厥、反应差、长期可遗留神经系统后遗症。
•妇女:发热、下腹痛、恶露异常、尿频尿急尿痛等。
•成人/老年人:发热、意识障碍、关节炎、皮肤软组织感染、尿路感染、心内膜炎、脑膜炎等,重症可致死亡。
4
致病机理要点
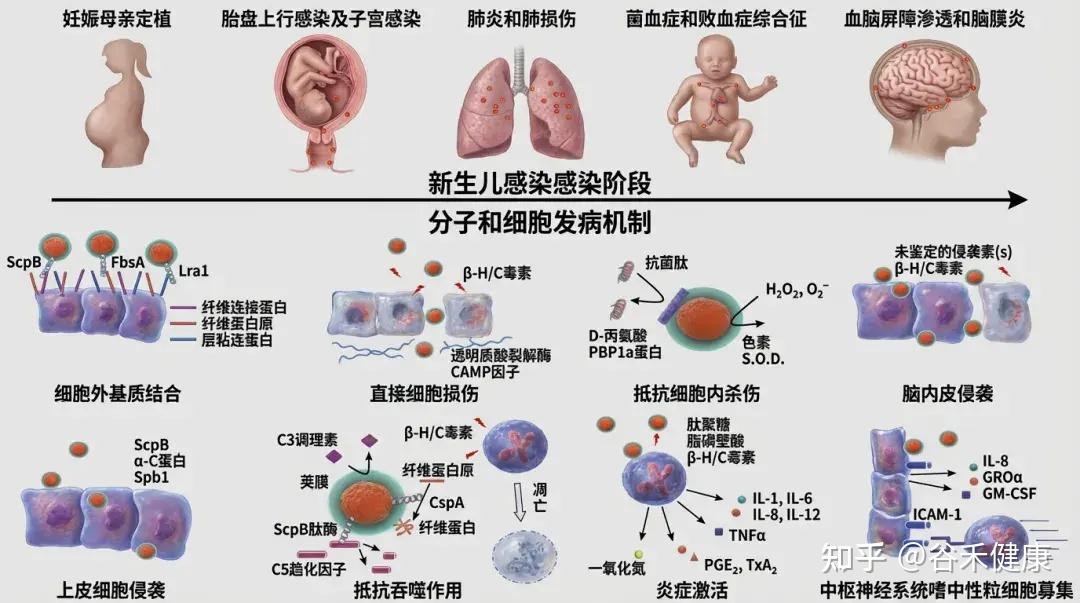
GBS定植依赖多种黏附因子(如Fbs、Lmb、SfbA、HvgA等)和生物膜形成能力,这些机制增强其在肠道黏膜的持久性和侵袭性。
•荚膜多糖(CPS):抗吞噬作用,是主要毒力因子。
•表面蛋白(如C蛋白):有助黏附与免疫逃逸。
•妊娠晚期母体阴道/直肠定植 → 围产期经产道传播给新生儿。
•新生儿免疫系统未成熟,补体及吞噬功能不足,易进展为侵袭性败血症和脑膜炎。
5
在肠道里的意义
•GBS 本身就可定植在肠道和阴道,成人特别是健康人群中检出并不少见。
•对普通非孕成人,大多是良性定植。
6
可能提示或潜在问题
•孕妇:
肠道是阴道定植的“菌库”,肠道检出 GBS,说明机体有GBS 定植风险。
阴道/直肠 GBS 定植 → 分娩时可传给新生儿 → 新生儿早发型败血症/肺炎/脑膜炎。
实务上,真正决定产时预防用药的,还是孕晚期阴道+直肠拭子筛查结果,而不是单纯一份“肠道菌群报告”。
•老年/慢病/免疫抑制人群:
肠道是 GBS 侵袭性感染的潜在来源(菌血症、软组织感染),但总体风险仍属相对低,要结合临床症状。
总结
GBS作为肠道定植菌,既是正常微生态的一部分,也具有转化为致病菌的潜力。其在肠道的存在与新生儿、孕妇及免疫低下人群的感染密切相关。
粘质沙雷氏菌(Serratia marcescens)是一种广泛分布于环境中的革兰氏阴性杆菌,近年来作为机会致病菌在医院获得性感染中日益受到关注,尤其威胁免疫功能低下者和新生儿。
1
基本信息
•革兰染色:革兰阴性杆菌。
•特点:部分菌株产生红色色素,肉眼可见“红色菌落”但临床分离株中无色素菌株更为常见。
具备多种耐药机制,对多类抗生素(如青霉素、头孢菌素、四环素等)有固有或获得性耐药。
•自然栖息地:水、土壤、植物以及医院潮湿环境(洗手池、呼吸机管路等)。
•重要性:典型的医院获得性感染和器械相关感染病原菌。
2
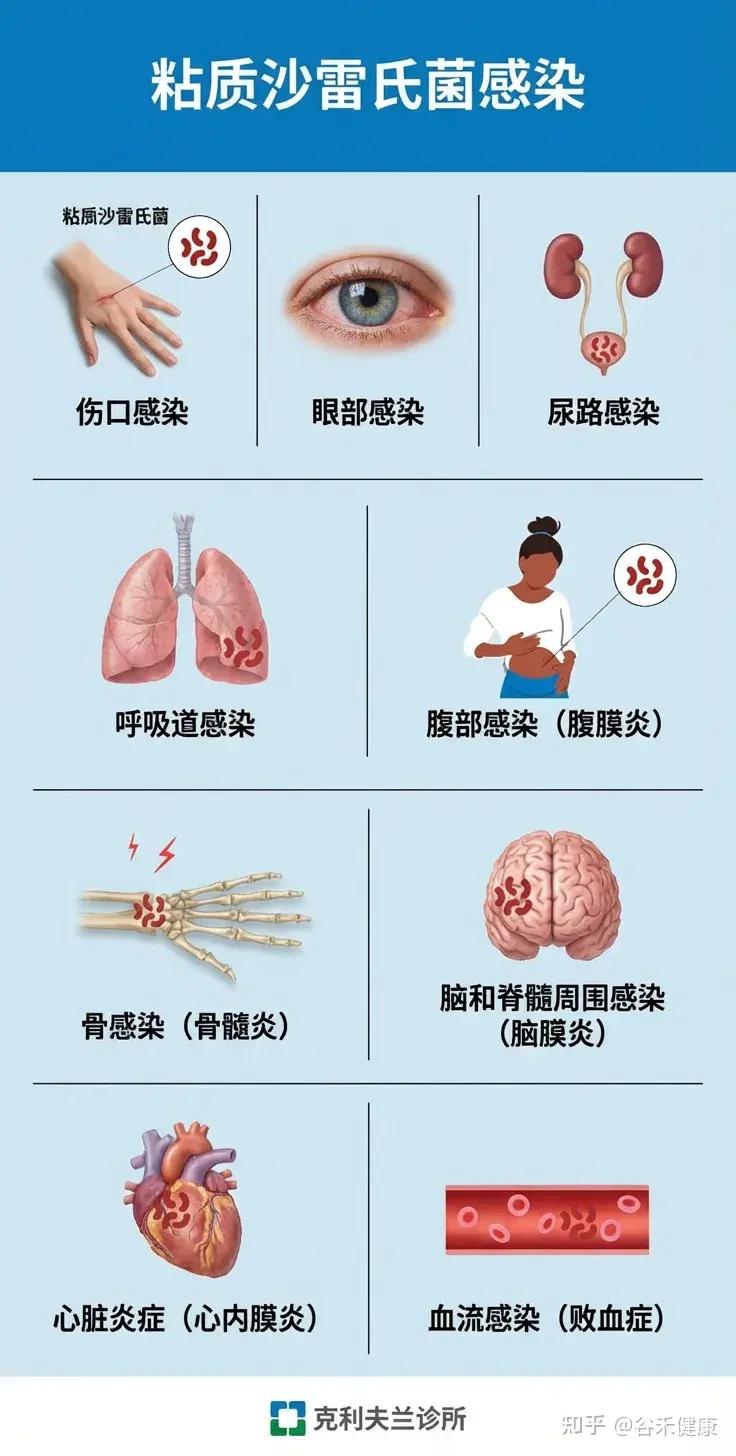
可能导致的疾病
S. marcescens可引发多种感染,尤其在医院环境和免疫低下人群中高发:
•血流感染(菌血症):常见于中心静脉导管相关感染。
•肺炎:包括医院获得性肺炎和重症肺炎。
•尿路感染:尤其在留置导尿管患者中。
•脑膜炎:多见于新生儿或免疫低下者。
•伤口和手术部位感染。
•罕见病例:可见于皮肤软组织感染、心内膜炎、骨髓炎等、角膜炎、结膜炎。
3
典型症状
S.marcescens与其他革兰阴性杆菌感染类似:发热、局部红肿热痛、脓性分泌物,重症可出现败血症、脓毒性休克。具体取决于感染部位和宿主状况:
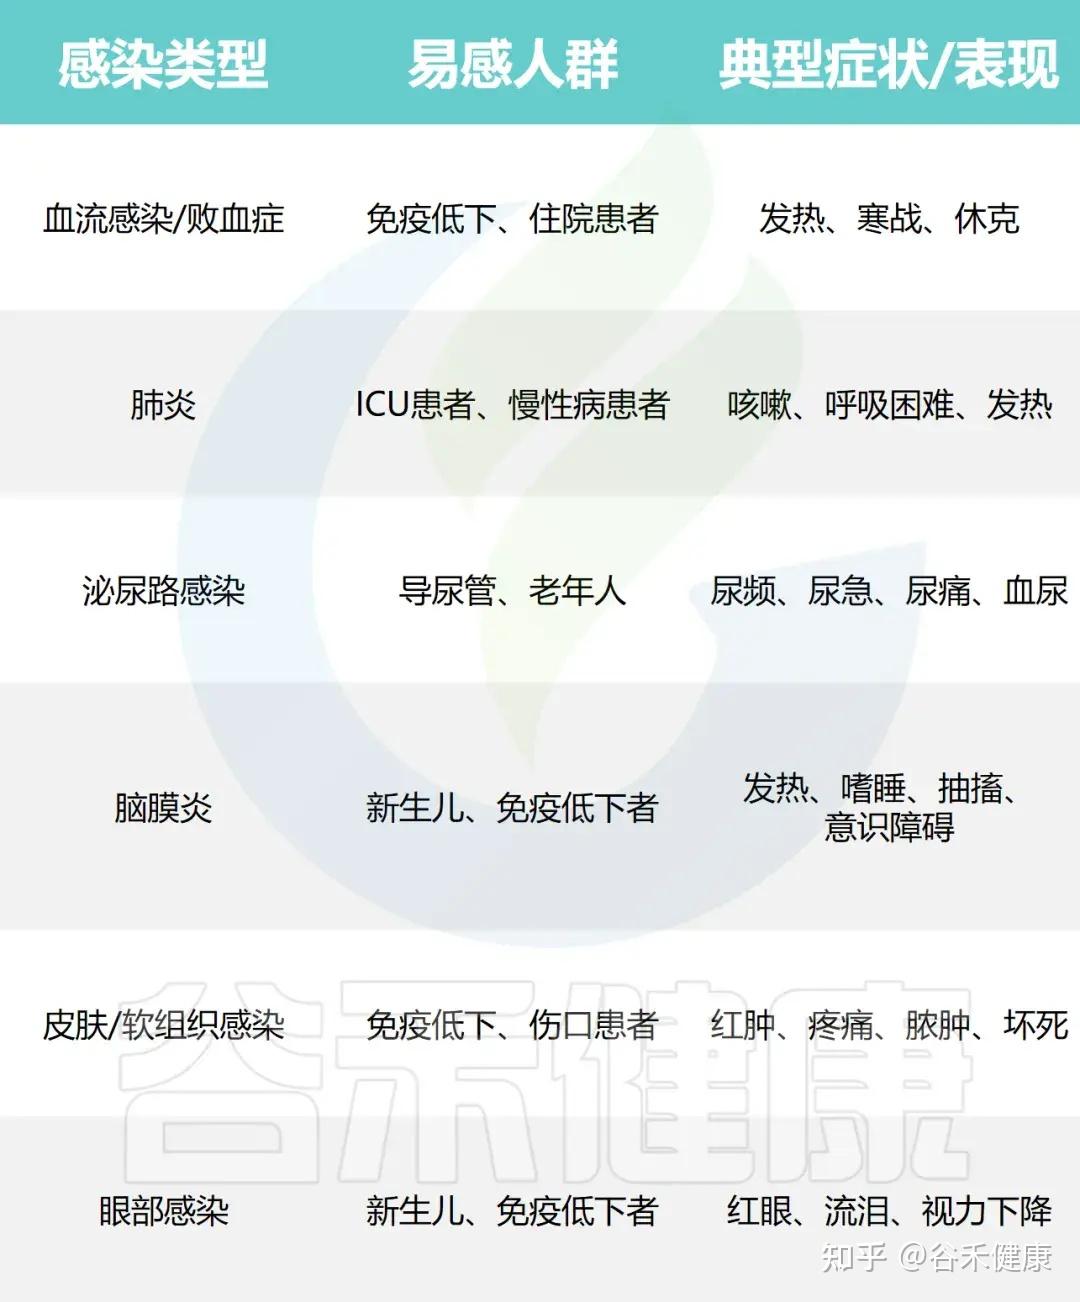
4
致病机理要点
•黏附与生物被膜形成:在导尿管、静脉导管、呼吸机管路表面形成生物膜,增加持久定植与耐药。
•产生多种水解酶和毒力因子:如蛋白酶、脂酶等,这些物质能够分解宿主组织成分,破坏细胞结构,削弱局部屏障功能,从而进一步导致组织损伤和感染扩散。
•常携带产β-内酰胺酶和多药外排泵:导致多重耐药 → 治疗困难。
•医院潮湿环境的储存与反复污染:是暴发院感的重要原因。
5
在肠道里的意义
•本身不是典型稳定的“常驻共生菌”,更常见为医院环境相关的机会致病菌。
•健康人群肠道中较少见,但在住院患者,尤其是ICU或长期使用抗生素者中检出率显著升高。
•新生儿与免疫低下:肠道定植可导致院内感染暴发,易扩散至血流、呼吸道等部位,致病率和死亡率高。
•抗生素耐药:具多重耐药性,易获得广谱抗生素耐药基因,增加治疗难度。
6
可能提示或潜在问题
•表明患者已被多重耐药医院菌群定植:肠道成为储存库,增加导尿管相关尿路感染、呼吸机相关肺炎及静脉导管相关菌血症的风险。
•肠道菌群失衡:定植后抑制益菌生长,降低菌群多样性,影响宿主免疫与发育。
•公共卫生与院感防控角度:若大量患者肠道定植 Serratia,病区院感暴发风险显著上升。并且可经医院环境、医护人员手部及医疗器械传播,且难以根除。
7
需要关注的人群
•ICU、血液肿瘤科、器官移植患者:如果粪便/直肠拭子筛查提示有 Serratia marcescens(尤其是已知多重耐药株):通常会在经验性抗生素选择、隔离防护上额外注意。
总结
Serratia marcescens是重要的机会致病菌,在肠道中不仅可引发局部和全身性感染,还会扰乱肠道微生态,促进耐药性传播,尤其对新生儿和免疫低下人群威胁极大。加强监测、感染控制和合理用药,是降低其危害的核心措施。
索氏志贺氏菌(Shigella sonnei),也叫宋内志贺菌,是全球重要的肠道致病菌,近年来在发达国家和部分发展中国家发病率持续上升,且耐药性问题日益突出。
1
基本信息
•革兰染色:革兰阴性短杆菌。
•生物学:不运动、不产H2S,极少发酵糖类。
•分类与流行病学:Shigella sonnei属于肠杆菌科、志贺菌属的四个主要种之一,在发达地区更常见(与 S. flexneri 相对),但随着全球卫生条件改善,其在中低收入国家的比例也在上升。
•传播途径:主要通过粪-口途径传播,包括被污染的水、食物、接触受污染物品等。人是其主要宿主,极低的感染剂量(1-100个细胞)即可引发疾病,极易造成暴发流行。
•耐药性:S.sonnei对多种抗生素(如氟喹诺酮、头孢菌素、阿奇霉素等)耐药性显著增强,已成为全球公共卫生关注的多重耐药菌株。
2
可能导致的疾病
•主要疾病:S.sonnei是细菌性痢疾(志贺菌病,shigellosis)的主要致病菌之一,尤其在发达国家占主导地位。
•特殊人群风险:儿童、免疫力低下者、男男性行为者(MSM)、流浪者等为高风险人群,部分病例可出现菌血症、重症结肠炎甚至败血症。
•暴发场景:可引起食源性、饮水型、性传播及机构内(如学校、收容所)暴发。
3
典型症状
•常见症状:水样腹泻、腹痛、发热、恶心、呕吐。部分病例可出现血便(即“痢疾”),严重者可有脱水、休克等并发症。
•潜伏期:通常为1-4天,部分个体可无症状但仍具传染性。
•重症:脱水、电解质紊乱、毒血症,少数可出现中毒性肠麻痹或中毒性脑病(儿童)。
•特殊表现:免疫力低下者、儿童及老年人更易发展为菌血症和全身感染。
4
致病机理要点
•极低的感染剂量(10~100个菌即可致病),因此高度传染性。
•S.sonnei通过多种毒力因子(如III型和VI型分泌系统、O抗原胶囊、群体感应信号4-HBA等)侵袭肠上皮细胞,破坏肠黏膜屏障,诱发炎症反应。
S.sonnei的毒力因子
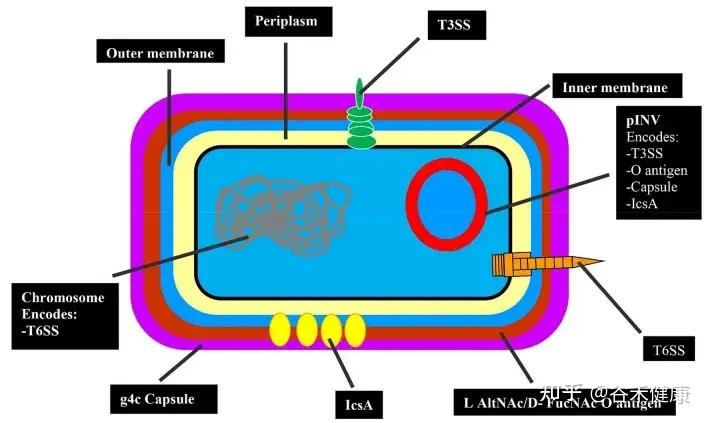
•其VI型分泌系统和细菌素(colicins)赋予其在肠道内与其他菌群竞争、占据生态位的能力,促进其流行。
•通过M细胞入侵肠上皮 → 细胞内增殖 → 从细胞侧面传播,造成上皮细胞坏死、溃疡。
•产生志贺毒素(Shiga toxin,一些菌株):抑制蛋白合成,导致黏膜细胞死亡,也可引起全身毒性反应
•粘膜受损导致渗出性炎症和溃疡 → 典型的黏液脓血便与里急后重。
•感染可显著扰乱肠道菌群多样性,部分患者即使临床恢复后,肠道微生态仍长期异常。
5
在肠道里的意义
•志贺菌是典型肠道致病菌,不是共生菌。
在粪便或肠道菌群中检出,尤其丰度不低时,通常意味着:
•正在感染期;
•或刚经历过感染,处于带菌/恢复期排菌状态。
6
可能提示或潜在问题
•急性期:细菌性痢疾 → 腹痛、里急后重、黏液脓血便、发热。
•恢复/带菌期:人本身症状可能已好转或无症状,但仍有:继续向他人传播的风险(粪–口),公共场所/托幼机构尤其要警惕。
•少数患者可发展为:
脱水、电解质紊乱;
中毒性肠炎/中毒性脑病(多见儿童);
感染后肠易激综合征等后遗症。
•耐药基因发展
S.sonnei对多种一线和二线抗生素(包括氟喹诺酮、头孢菌素、阿奇霉素等)耐药株迅速扩散,导致治疗选择受限。耐药基因可通过质粒在肠道内水平转移,增加耐药性在肠道微生物群中的传播风险。
7
检出后的处理思路
•若伴随腹泻、发热等症状 → 需要按细菌性痢疾评估和管理。
•即使暂时无症状,但粪便志贺菌阳性,尤其在托幼机构、食品从业人员等,应当从传染病防控角度处理。
总结
Shigella sonnei在肠道中不仅引发急性腹泻,还因其强竞争力、复杂致病机制和多重耐药性,带来持续的公共卫生威胁。加强监测、合理用药、疫苗研发及肠道微生态修复是未来防控的关键方向。
化脓性链球菌(Streptococcus pyogenes,简称GAS)是A群β溶血性链球菌。是全球重要的人体病原体,能引发从轻微到危及生命的多种疾病。
1
基本信息
•分类与特性:S. pyogenes 属于A群β溶血性链球菌,革兰阳性球菌,常呈链状排列。该菌能在富血培养基上生长并产生完全溶血。
•重要特点:多种毒力因子,可致急性感染及免疫后遗症。
GAS的毒力因子
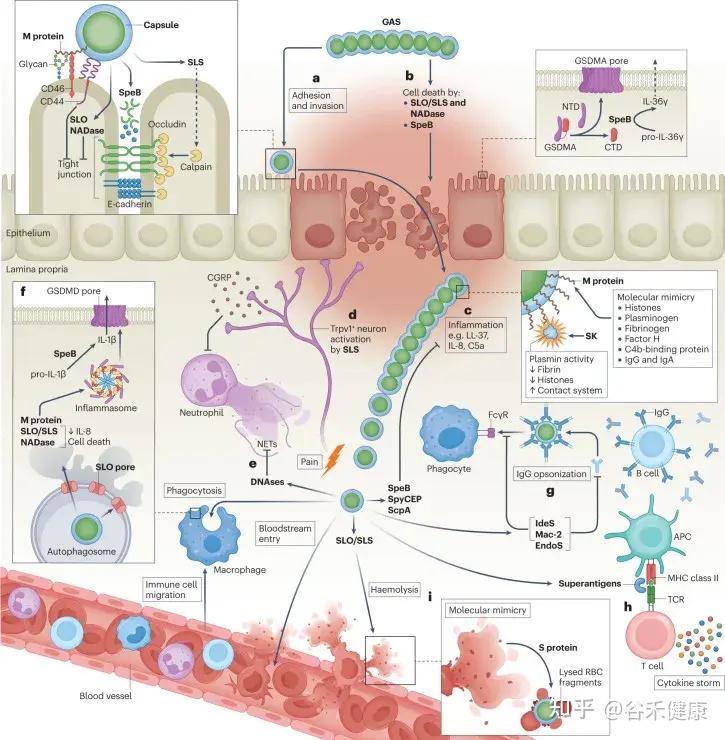
•传播途径:主要通过呼吸道飞沫、密切接触传播。上呼吸道和皮肤是主要的感染部位。
•流行病学:全球每年导致约50万例死亡,尤其在卫生条件较差地区危害更大。
2
可能导致的疾病
Streptococcus pyogenes感染后可能引发多种类型的疾病,如下:
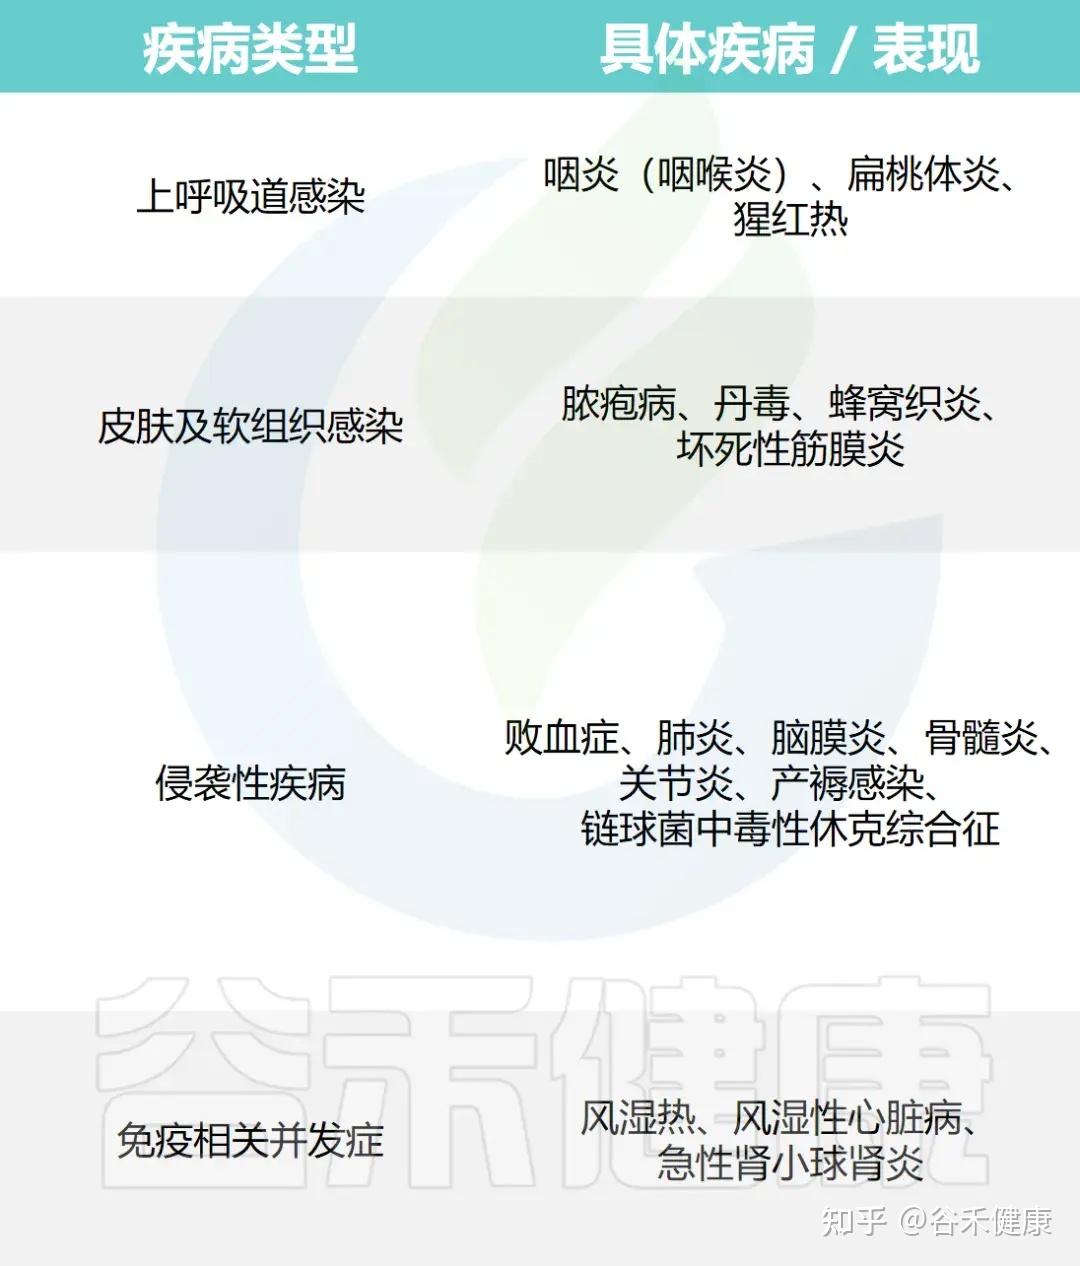
3
典型症状
•咽炎/扁桃体炎:喉咙痛、发热、咽部充血、扁桃体肿大、化脓、软腭点状出血、颈部淋巴结肿大。
•猩红热:皮疹(常为沙粒状)、“草莓舌”、高热、咽痛、腺体肿大。
•皮肤感染:局部红肿、疼痛、脓疱、溃烂,严重时可发展为坏死性筋膜炎。
•侵袭性疾病:高热、休克、意识障碍、器官功能障碍(如肺炎、脑膜炎、败血症等)。
•免疫并发症:风湿热表现为关节炎、心脏炎、皮下结节等;急性肾小球肾炎表现为血尿、水肿、高血压,多在皮肤或咽部感染后1–3周出现。
4
致病机理要点
•M蛋白:抗吞噬、促进黏附,是关键毒力因子,也与风湿热的分子模拟相关。
•外毒素(SPE:streptococcal pyrogenic exotoxins):可作为超抗原 → 引起大量细胞因子释放 → 毒性休克、猩红热皮疹。
•溶血素(SLO、SLS):溶血、损伤组织。
•透明质酸荚膜:抗吞噬作用。
•免疫后遗症(风湿热、肾炎):多是免疫交叉反应与免疫复合物沉积所致,而非细菌直接侵袭。
5
在肠道里的意义
•主要定植于咽部和皮肤,并非典型肠道菌。
•在肠道菌群检测中检出,多见几种情况:
1.咽部分泌物被吞咽→通过粪便短暂排出;
2.可能存在上呼吸道感染;
3.极少数真正的肠道/腹腔感染(如坏死性小肠结肠炎等极罕见情形)。
6
可能提示或潜在问题
一般来说,单在菌群检测里偶然检出意义有限。真正需要警惕A组链球菌的,是:
•侵袭性疾病风险
GAS可通过肠道引发罕见但严重的腹膜炎,常被误诊为阑尾炎,延误治疗可能危及生命。女性、免疫抑制者及有水痘史者为高危人群,早期识别和抗生素治疗至关重要。
•免疫相关并发症
反复或持续感染可诱发免疫介导的疾病,如急性风湿热、风湿性心脏病和急性肾小球肾炎,尤其在发展中国家致死率高。
•功能性消化不良与肠道功能障碍
最新动物研究显示,GAS定植可通过皮肤-肠道轴影响胃肠动力,抑制RhoA/ROCK1信号通路,导致食欲下降、体重减轻和胃肠蠕动障碍,提示其可能加重功能性消化不良。
•抗生素耐药性与公共卫生挑战
GAS对青霉素的敏感性下降及大环内酯类耐药的增加,威胁一线治疗手段,需密切监测和合理用药。
总结
S.pyogenes是一种高度多样且致病力强的细菌,既可引发常见的咽炎、皮肤感染,也可导致危及生命的侵袭性疾病和免疫相关并发症。典型症状因疾病类型而异,需临床高度警惕并及时治疗。
解脲支原体(U.urealyticum,Uu),又称为溶脲脲原体。主要寄居于泌尿生殖道,在特定条件下可致病。
1
基本信息
•归类于支原体类,无细胞壁(对β-内酰胺类天然耐药)
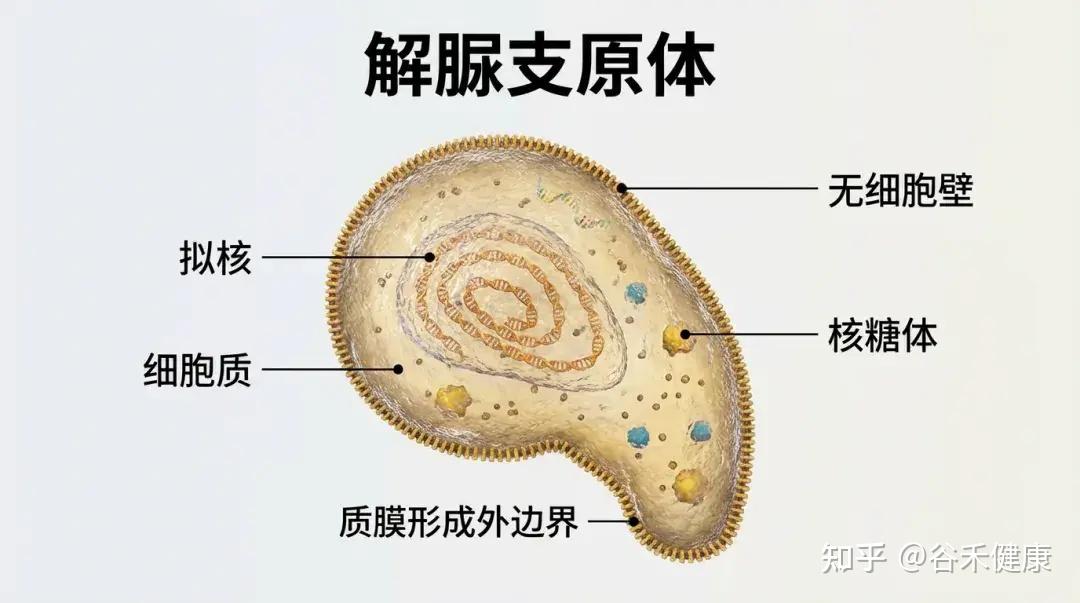
•极小型(“类原核生物”),通过固着于黏膜表面生存。
•自然栖息地:男女泌尿生殖道黏膜正常菌群之一,常为性传播。
2
可能导致的疾病
•男性:非淋菌性尿道炎(NGU),精囊炎、附睾炎等。
•女性:宫颈炎、盆腔炎、输卵管炎、不孕风险增加。
•妊娠相关:绒毛膜羊膜炎、羊水感染、早产、胎膜早破。
•新生儿:肺炎、菌血症、脑膜炎,尤其极低出生体重儿。
•免疫低下者:机会性感染。
3
典型症状
•男性非淋菌性尿道炎:尿道刺痛、瘙痒、轻度分泌物,症状可较轻、反复发作。
•女性宫颈炎/盆腔炎:下腹痛、白带增多、性交痛、不规则出血。
•妊娠并发症:发热、下腹痛、胎动异常、早产征象。
•新生儿:呼吸窘迫、发热或体温不稳、反应差等。
4
致病机理要点
•黏附因子:附着于泌尿生殖道上皮细胞表面,干扰纤毛功能。
•尿素酶:分解尿素→生成氨和二氧化碳:
过量氨对上皮细胞有毒性作用,引发局部炎症;
改变局部pH,影响黏膜屏障。
•诱导宿主产生多种炎症因子(如IL-6、IL-8),使局部出现慢性炎症与微环境改变,影响孕囊稳定和胎膜完整性。
5
在肠道里的意义
•其典型定植部位主要位于泌尿生殖道黏膜,包括尿道、宫颈及阴道等区域,在这些部位最易形成稳定的定植状态并长期存在。
•在粪便或肠道菌群中也可检出该菌,但多数情况下为采样过程中会阴部污染所致,尤其在女性样本中这一情况更为常见。
6
可能提示或潜在问题
•对肠道本身的影响:目前尚缺乏充分而有力的科学证据,尚不能明确证明其在肠道内具有直接的致病作用,更多情况下可能仅为暂时定植或伴随现象。
•需要重点关注的情况是:如果在生殖道相关样本(如尿道拭子、宫颈分泌物)中检测到该菌丰度较高,同时伴随出现尿道炎、不孕或妊娠相关并发症等临床表现,此时检测结果才真正具有临床意义和诊断参考价值。
注:若仅在肠道菌群中偶然检出该菌,而未见相应的临床症状或体征,通常不建议仅依据此结果进行疾病诊断或启动抗菌治疗。
Mycoplasma pneumoniae(肺炎支原体)是一种无细胞壁、体积极小的专性寄生细菌,是全球社区获得性肺炎(CAP)尤其是儿童和青少年中最常见的病原体之一。其感染可导致多种呼吸道及肺外疾病,临床表现多样,部分病例可进展为重症甚至危及生命。
1
基本信息
•肺炎支原体为最小的自由生活原核生物之一,缺乏细胞壁,对β-内酰胺类抗生素天然耐药。
•主要通过飞沫传播,潜伏期为2-3周。
•该菌主要寄生于呼吸道上皮细胞,通过特殊的终末附着器实现黏附、侵袭和免疫逃逸。
•近年来,耐大环内酯类(如红霉素)菌株比例显著上升,尤其在中国和亚洲地区。
2
可能导致的疾病
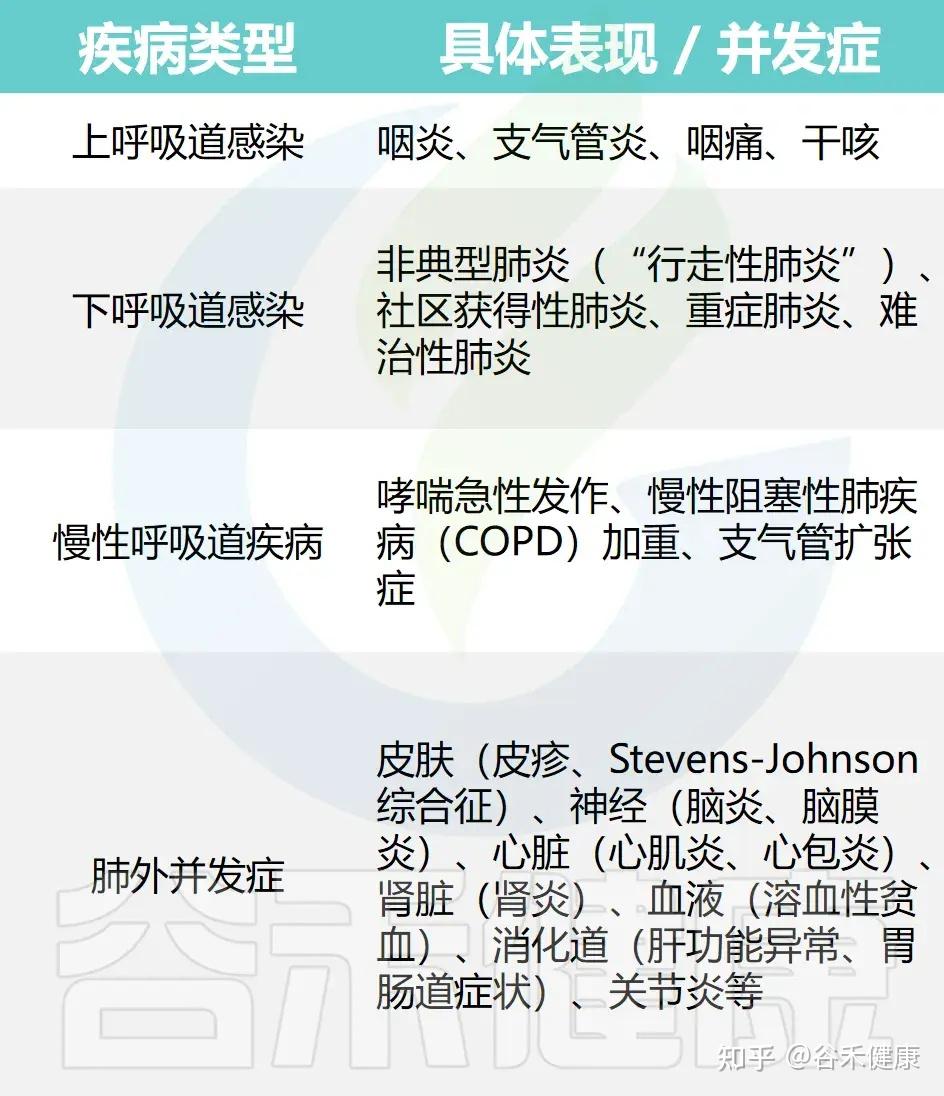
3
典型症状
•呼吸道症状:持续性干咳(最常见,85-96%)、发热(86-96%)、咽痛、头痛、乏力、气促、胸痛、喘息等。
•肺外症状:皮疹、恶心/呕吐、关节痛、神经系统症状(如头痛、意识障碍)、心肌损伤、肝肾功能异常等,约1/4患者可见。
•儿童表现:咳嗽、哮喘样症状、低热,部分伴有皮肤表现(25%)、消化道症状(33%)。
•影像学:单侧或多叶浸润、实变、胸腔积液等,部分病例可见肺不张或大面积病变。
4
致病机理要点
•P1黏附蛋白:结合呼吸道上皮细胞表面的纤毛,牢固黏附 → 破坏纤毛运动,干扰黏液清除。
•产生CARDS toxin(Community-Acquired Respiratory Distress Syndrome toxin)等毒素,损伤上皮细胞,引发炎症。
•诱发宿主细胞免疫和体液免疫反应,其中部分交叉反应导致肺外免疫并发症(如溶血性贫血、皮疹、神经系统损害等)。
•由于细胞壁缺失,细菌形态柔软、易穿行于黏膜表面间隙,且对多种抗生素类别不敏感(需用大环内酯、四环素或氟喹诺酮类)。
5
在肠道里的意义
•是典型的呼吸道病原体(气道黏附),不属于肠道定植菌。
•在肠道菌群测序中检出,通常是吞咽气道分泌物中的菌体/DNA,短暂通过消化道。
6
可能提示或潜在问题
•一般不直接导致肠道疾病,更多表明可能存在呼吸道感染。但M. pneumoniae感染可显著改变肠道菌群结构,降低有益菌如乳酸杆菌和双歧杆菌的丰度。这种菌群失衡与炎症因子升高密切相关,尤其在伴喘息的患儿中更为明显。同时肠道菌群的变化会加剧免疫失调,促进炎症反应,增加哮喘等并发症风险。
•肺炎支原体真正的危害仍在:非典型肺炎、持续干咳、肺外免疫并发症(皮疹、溶血性贫血、中枢神经系统累及等)。
总结
M.pneumoniae不仅影响呼吸系统,还可通过肠道微生态紊乱和免疫调节,导致肠道损伤和多系统炎症反应。关注其肠道影响有助于早期识别非典型病例,并为综合治疗提供新思路。
Clostridium symbiosum(共生梭菌)是一种严格厌氧、具鞭毛、可运动、不产毒素的芽孢杆菌,属于厚壁菌门,在人体肠道中可作为正常菌群存在,但近年来被认为是新兴的致病菌,临床分离较为罕见。
1
基本信息
•形态与生理特征:C. symbiosum为芽孢形成、鞭毛运动、革兰氏阳性杆菌,但因其对氧的敏感性,常表现为革兰氏阴性染色。它不产毒素,能发酵多种糖类。
•生态分布:主要存在于人类肠道正常菌群中,也可在动物肠道及环境中发现。
•致病性:与其他梭菌如 C.perfringens、C.difficile 相比,其致病性报道较少。多在严重基础病或免疫抑制、肠道屏障破坏时成为机会致病菌。
2
可能导致的疾病
目前临床报道不多,可见于:
•腹腔内感染:如穿孔性腹膜炎、腹腔脓肿(与肠道穿孔/手术有关)。
•菌血症/败血症:多为重症患者、肿瘤患者、长期住院或使用广谱抗生素者。
•结直肠癌:C. symbiosum在结直肠癌患者肿瘤组织中显著富集,并与腺瘤复发风险增加相关。动物实验显示其可促进肠道干细胞增殖和癌变,机制涉及支链氨基酸代谢和胆固醇合成通路激活。
•可能参与某些肠道菌群失衡相关疾病(如代谢性疾病、肠炎)中的“共病菌”,但具体因果尚在研究中。
3
典型症状
•无特异性,通常与原发病及感染部位相关:
-腹痛、发热、白细胞升高、腹膜刺激征(腹腔感染);
–寒战、高热、低血压、脓毒性休克表现(菌血症)。
•其他:如合并腹腔脓肿、手术部位感染等,表现为局部红肿、疼痛、化脓等。
•多数为混合感染:与其他肠道厌氧和需氧菌同在,单独分离报道较少。
4
致病机理要点
•作为梭菌,可形成芽孢,在不利环境中长期存活;进入厌氧环境(如坏死组织、闭合脓腔)后即可迅速繁殖。
•当肠道屏障受损(如穿孔、手术、肿瘤浸润)时,可随肠内容物移位至无菌体腔或血流,引发机会性感染。
•可能分泌组织降解酶和毒力因子,但其毒力谱较艰难梭菌(C. difficile )等梭菌研究尚不充分。
5
在肠道里的意义
这是典型的肠道厌氧共生菌之一,在健康人粪便中检出是常见且正常的。
•能量代谢与交互喂养:C. symbiosum 能分解膳食抗氧化剂(如麦角硫因),产生可被其他菌(如 Bacteroides xylanisolvens)利用的电子受体,促进厌氧能量代谢和菌群协同生长。这种交互喂养机制有助于维持肠道微生态稳定,并可能影响个体疾病风险。
•短链脂肪酸(SCFA)合成:C. symbiosum 参与乙酸等 SCFA 的合成,SCFA 对维持肠道屏障、调节免疫和抑制肿瘤细胞增殖具有重要作用。
6
可能提示或潜在问题
•菌群失衡的“标志菌”之一(研究层面):
一些研究发现,在某些疾病(如结直肠癌、代谢性疾病、肠道炎症状态)中,某些梭菌(包括C.symbiosum在内)丰度升高或降低,可作为潜在“生物标志物”。但这些更多是统计学相关性,并不能简单说“检出/增多 = 一定有某种病”。
•机会致病菌:
当肠道屏障严重破坏(穿孔、手术、肿瘤浸润)或极度免疫抑制时,共生梭菌可随肠内容物进入腹腔或血流,引起腹腔感染或厌氧菌败血症。真正发生时,往往是与其他肠道菌“混合感染”,而不是它单独“作恶”。
•抗药性:
C. symbiosum中携带多种环境来源的抗生素抗性基因,提示其在抗药性传播中的重要角色。
总结
Clostridium symbiosum 在肠道生态、能量代谢、疾病发生及抗药性传播中扮演着双刃剑角色。其作为结直肠癌等疾病的潜在生物标志物和微生态调节靶点,具有重要研究和临床应用前景,但也需警惕其条件致病性和抗药性扩散风险。
谷禾健康
银屑病,又叫牛皮癣,会导致出现皮疹伴发痒的鳞状斑块,最常见于膝盖、肘部、躯干和头皮。通常呈周期性发展,发作数周或数月,然后消退一段时间,长期的发作和复发会给患者带来很大的痛苦和困扰,严重影响到生活质量和日常工作。银屑病影响着全球超过 6000 万成人和儿童。
银屑病是一种免疫介导的炎症性皮肤病,涉及遗传和环境因素之间复杂的相互作用。免疫学和遗传学研究确认IL-17和IL-23是银屑病发病机制中的关键驱动因子。然而,由于银屑病的反复发作和难治性质,目前还没有简单治愈方法。
在有遗传倾向的个体中,非遗传因素也是触发牛皮癣发病和复发所必需的,其中包括感染、皮肤和肠道微生物群失调、脂质代谢失调、性激素失调、精神疾病等,其他环境因素也可能诱发牛皮癣,例如皮肤创伤、不健康的生活方式和药物。
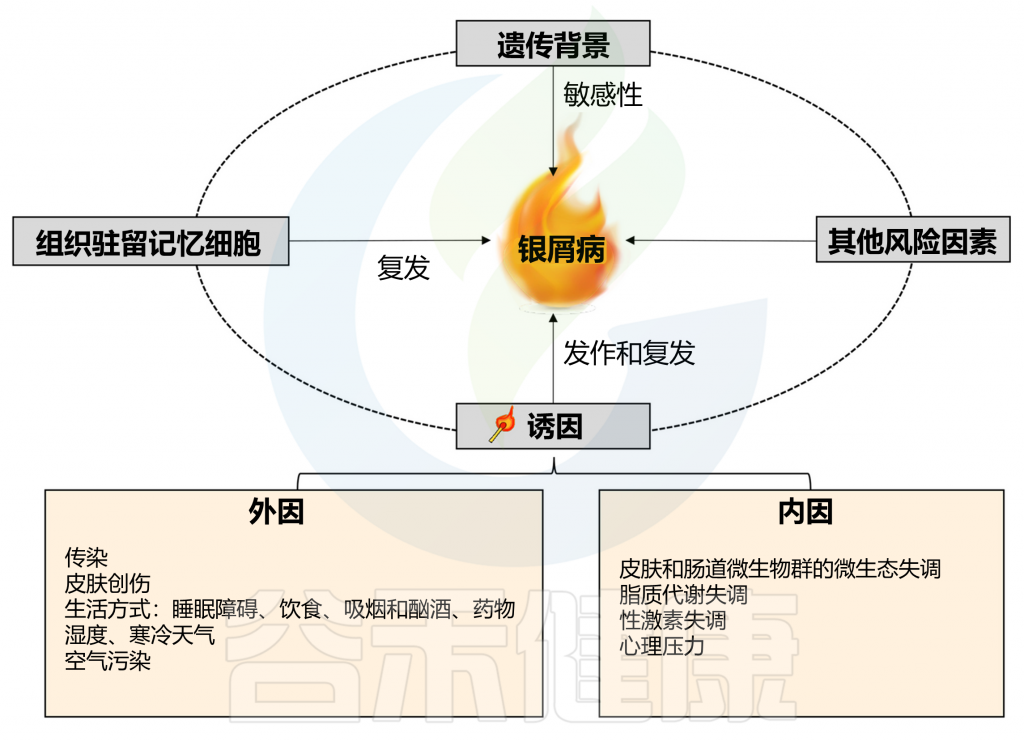
Liu S, et al., Cell Communication and Signaling, 2024
大量研究发现,银屑病不再被认为是仅影响皮肤的疾病,而是被视为一种全身性炎症性疾病,这与多种共病相关,包括结肠直肠癌、代谢综合征、肥胖、克罗恩病和溃疡性结肠炎等。微生物感染被认为是银屑病的重要病因,尤其是链球菌上呼吸道感染。
肠道和皮肤之间存在很强的双向联系,在肠道-皮肤轴中,皮肤炎症会影响肠道健康,而肠道微生物群也会影响皮肤健康,与健康对照相比,牛皮癣患者的肠道菌群失调,多样性降低,Firmicutes/Bacteroidetes(F/B)异常,大肠杆菌水平往往更高,Lachnospira、Akkermansia muciniphila、Blautia、Faecalibacerium减少,这种变化与人类结肠微生物群中丁酸盐代谢和产丁酸菌相关。丁酸与调节多种炎症因子有关,包括脂多糖、TNF-α、IL-10、IL-1β等。
扩展阅读:
其他菌群变化也与银屑病患者中与炎症相关标志物的程度相关联,特别是IL-2受体,其与Phascolarctobacterium呈正相关,与Dialister呈负相关。Phascolarctobacterium和Dialister的相对丰度可作为银屑病活动的预测指标。详见:
肠道核心菌属——考拉杆菌属(Phascolarctobacterium)
近日,来自华中科技大学同济医学院附属协和医院皮肤科的研究人员,总结了牛皮癣发病和复发的触发因素,发表在《Cell Communication and Signaling》上。
本文结合牛皮癣与肠道菌群的关联,更新了有关这些因素如何引发该疾病的潜在机制的当前证据。了解这些触发因素如何在银屑病的发病和复发中发挥作用,可以深入了解银屑病的发病机制,并更好地进行临床治疗。
银屑病是一种常见的红斑鳞屑性皮肤病,具有多种皮肤表现和全身参与,可影响任何皮肤部位,发生于任何年龄和任何地理区域。
在牛皮癣患者中,免疫系统错误地攻击了健康的皮肤细胞,导致皮肤细胞生长过快,形成皮肤表面的鳞屑。
银屑病的常见体征和症状包括:
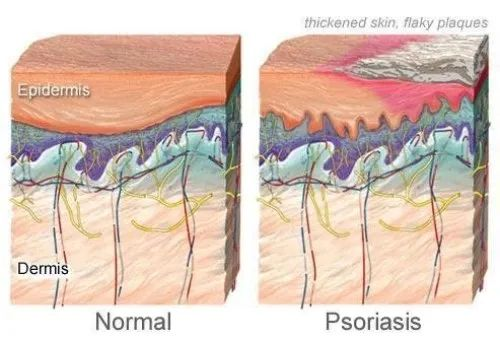
图源:WebMD
根据银屑病临床表现的不同,通常分为以下类型:
其他还包括:
牛皮癣和湿疹一样吗?
牛皮癣和湿疹是两种不同的皮肤病。这两种情况都会引起类似的症状,如皮肤变色、皮疹和瘙痒。
牛皮癣会传染吗?
牛皮癣不会传染。接触他人的牛皮癣皮疹不会感染牛皮癣。
牛皮癣是一种慢性炎症性皮肤病,世界卫生组织最近的报告指出,牛皮癣的患病率正在上升,在发达国家从 1.5% 到 5% 不等。
据统计,中国的牛皮癣发病率在1.3%-2.4%之间,约有1000万-2000万的患者。男性的发病年龄在30-39岁和60-69岁,而女性的发病时间大约要早十年,年轻人群体中发病率也有上升的趋势。
许多银屑病患者可能持续数年毫无症状,直至某种环境因素诱发这种疾病。常见的银屑病诱发因素包括:
银屑病关节炎
一般来说,银屑病越严重,患银屑病关节炎的风险就越高。2015 年欧洲一项研究发现,十分之一的银屑病患者患有未确诊的银屑病关节炎。未确诊的银屑病关节炎患者的生活质量受到很大影响。
心血管疾病
研究表明牛皮癣与心血管疾病之间存在联系,慢性炎症可能是心血管疾病和中风风险增加的原因,因为随着时间的推移,炎症会对动脉造成损害。
代谢综合征
根据一项研究,患有牛皮癣的人患代谢综合征的风险,是其他没有牛皮癣的人的六倍。
肥胖
研究表明,与一般人群中的其他人相比,牛皮癣患者更有可能肥胖。
炎症性肠病
牛皮癣和炎症性肠病 之间存在联系。《JAMA Dermatology》杂志 2018 年的系统综述和荟萃分析结果表明,牛皮癣与炎症性肠病相关。
抑郁症
抑郁症是银屑病的首要合并症。患有皮肤问题会导致抑郁。对于某些人来说,治疗牛皮癣可以帮助减轻抑郁症状并提高生活质量。
以上我们了解了关于银屑病的基本情况,接下来,我们从感染,微生物群失调,脂质代谢失调,心理压力和精神障碍,性激素失调,其他环境因素等方面来了解银屑病的相关触发机制。
多种微生物是银屑病的触发因素,见下表。
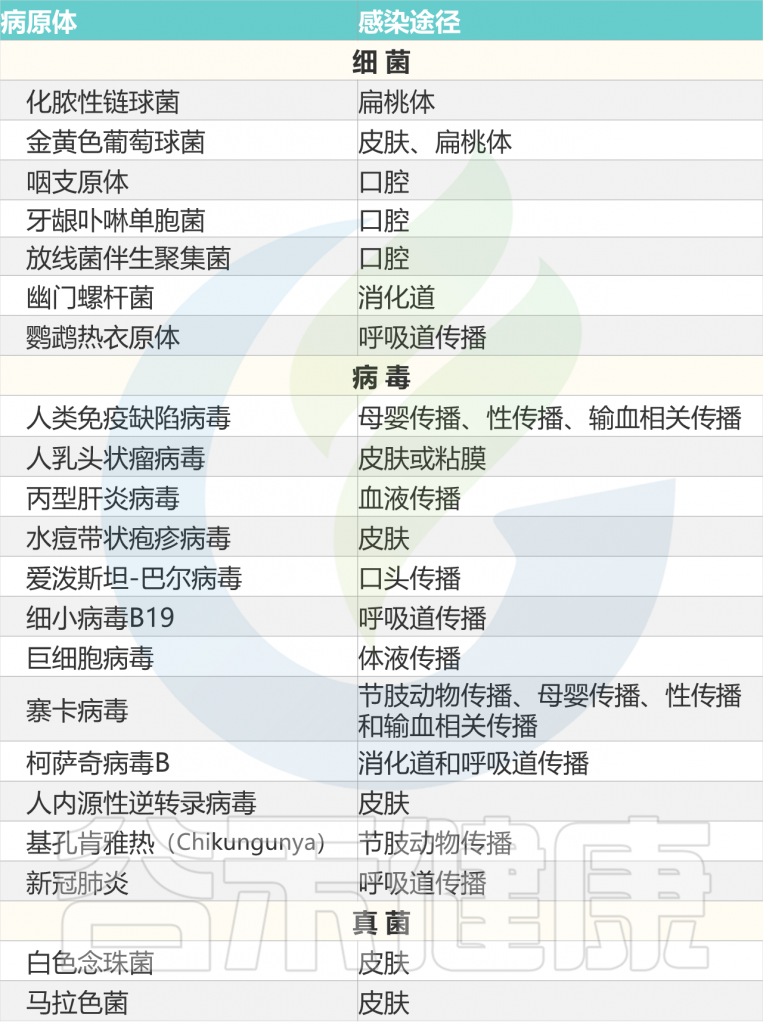
Liu S, et al., Cell Communication and Signaling, 2024
化脓性链球菌引起的扁桃体感染,可引发或加剧斑块状和滴状银屑病中的银屑病皮肤病变。
研究人员通过遗传关联研究将链球菌咽喉感染与银屑病联系起来,表明公认的银屑病风险等位基因HLA-C06:02是链球菌扁桃体炎的风险因素,而推断的银屑病风险单倍型HLA-C06:02/HLA-B*57:01是扁桃体炎最强的风险因素。
儿童银屑病与复发性扁桃体炎密切相关
一项临床队列研究还报道,年龄从10岁-11岁的儿童银屑病与复发性扁桃体炎密切相关。在银屑病患者的皮肤和扁桃体组织中发现了相同的T细胞克隆,提示在链球菌感染后的疾病中扁桃体内产生致病性T细胞。因此,建议将扁桃体切除术作为解决银屑病的干预措施,这可以减少循环T细胞的数量。
但仍应进行长期随访,验证扁桃体切除术的适应症和长期益处。同时,没有确凿的证据表明抗链球菌干预措施的有效性。有趣的是,肛周链球菌感染也会引发喉结型银屑病,但它不如喉咙感染常见。
化脓性链球菌喉咙感染和银屑病之间发病联系
链球菌扁桃体炎可能通过以下多种机制来引发牛皮癣:
a) 化脓性链球菌(SP)的M蛋白模仿人类 K17
CD8 + T细胞识别银屑病患者中链球菌M蛋白和人角蛋白17(K17)共享的表位,K17可以成为CD8的自身抗原和靶点 + 以HLA-C*06:02限制性模式浸润银屑病皮肤病变的T细胞。
b) SP超抗原激活IL-12的释放,然后促进CD4+T 细胞中皮肤归巢CLA的表达
皮肤寻求性皮肤淋巴细胞相关T细胞(CLA + T细胞)与化脓性链球菌的相互作用,为理解银屑病的免疫发病机制提供了新的概念。通过刺激IL-12的产生途径,化脓性链球菌超抗原诱导T细胞上皮肤特异性归巢受体(CLA抗原)的表达,并促进CLA+ T细胞向皮肤的迁移。
此外,在携带HLA-C*06:02的银屑病患者中,如果他们患有化脓性链球菌引起的扁桃体炎,其CLA+ T细胞和表皮细胞的培养中观察到高Th17反应。化脓性链球菌能够在斑块型和滴状银屑病中诱导循环CLA+ T细胞产生IL-17,这进一步在CLA+ T细胞迁移到皮肤后诱导银屑病自身抗原(如ADAMTS样蛋白5和LL-37)的产生。在体外银屑病模型中,化脓性链球菌提取物诱导CLA+ T细胞产生IL-9,从而上调IL-17A的产生。
c) 化脓性链球菌肽聚糖 (PG) 的辅助作用
含有PG的巨噬细胞与PG特异性CD4+密切接触银屑病病变中的T细胞,然后是PG特异性CD4 + T细胞以HLA-DR等位基因限制的方式增殖并产生IFN-γ。此外,PG固有识别的改变增强了T细胞对化脓性链球菌的反应,并诱导银屑病。
图2 感染和皮肤微生物失调可能诱发银屑病
Liu S, et al., Cell Communication and Signaling, 2024
金黄色葡萄球菌在大约60%的银屑病患者的皮损和鼻孔中,而在5%至30%的健康个体中定植。
从22名银屑病患者中的11名患者的喉咙中分离出金黄色葡萄球菌。
一项研究显示,与健康对照组相比,银屑病受试者对超级抗原毒素的炎症皮肤反应增加,银屑病表皮中TNF-αmRNA水平增加。
然而,在银屑病病变中没有发现表达特异性T细胞受体Vβ的T细胞的选择性扩增,这是超抗原刺激的标志。这种T细胞依赖性反应可能是由于角质细胞中HLA-DR的高表达,增强了皮肤对超级抗原的炎症反应。
此外,银屑病的严重程度与葡萄球菌肠毒素的产生显著相关。
牙周炎患者患银屑病的风险较高
牙周炎期间,口腔微生物群可能影响银屑病的发展和恶化。一项涉及13项研究的荟萃分析显示,牙周炎患者患银屑病的风险高于对照组。
口腔微生物(尤其是咽支原体)在银屑病发展中的作用
一名患者最初患有滴状银屑病,后来发展为斑块型银屑病,其皮肤感染了咽支原体(Mycoplasma faucium),属于口腔软壁菌门,这种细菌出现在银屑病棘层角质形成细胞中,以及银屑病损害上层真皮的细胞外。
与对照组(骨关节炎)相比,在银屑病关节炎(PsA)患者的血清和滑液中也发现了更多种类和更高浓度的口腔细菌(牙龈卟啉单胞菌和Prevotella nigrescens)DNA。
牙龈病原体(尤其是牙龈卟啉单胞菌)在牙周炎与银屑病发病机制中的桥梁作用
牙龈卟啉单胞菌和放线菌聚集杆菌(Aggregatibacter actinomycetemcomitans)是与牙龈炎相关的病原体,可激活人CD14 + 单核细胞在体外增强Th17分化和IL-17产生。牙龈卟啉单胞菌蛋白酶可以通过降解其他关键细胞因子如IL-12,增强Th17系列反应,而髓样抗原呈递细胞(APCs)被触发产生与Th17相关的细胞因子IL-1β、IL-6、IL-23。然而,与健康受试者相比,牙周炎患者的牙龈组织中IL-17+细胞的频率增加,而在外周血中没有增加。
牛皮癣的皮肤炎症可以通过宿主的抗病毒免疫反应失调由病毒感染引发。
视黄酸诱导基因I (RIG-I)是病毒的主要细胞质传感器。通过激活RIG-I抗病毒信号传导,病毒感染可以在遗传易感个体中触发CD11c+树突细胞产生IL-23的表达,从而导致银屑病的发展。
HIV
与普通人群相比,人类免疫缺陷病毒(HIV)患者的银屑病标准化发病率更高。HIV可以直接作为超抗原或抗原呈递的共刺激因子触发银屑病,在HIV感染期间,活化的CD8 +T细胞产生更多的IFN-γ。神经肽物质P可以从HIV感染的免疫细胞中释放,然后调节炎症和免疫反应,刺激角质细胞的增殖。
HPV
人乳头瘤病毒(HPV)也与银屑病相关。一项针对66274名HPV感染患者的全国性人群队列研究显示,HPV感染后银屑病的患病率更高。
SARS-CoV2
严重急性呼吸综合征冠状病毒2型(SARS-CoV2)也被认为是银屑病恶化的原因。在严重急性呼吸系统综合征冠状病毒感染患者的血浆中炎性细胞因子水平升高,粒细胞集落刺激因子和TNF-α的浓度与疾病严重程度相关。
此外,一些接种新冠肺炎疫苗的患者患有慢性免疫介导的皮肤病,如牛皮癣,但皮肤反应通常轻微且自限性的。
NLRP1炎症小体
NLRP1是已鉴定的炎症小体形成模式识别受体(PRRs)之一,先天免疫系统可以通过该受体检测病原体。在正链RNA病毒感染过程中产生的长双链RNA(dsRNA),例如Semliki Forest病毒,可以结合并激活人类角质形成细胞中的NLRP1炎症小体。NLRP1炎症体在促进银屑病发病的过程中发挥作用,无论是通过增加对银屑病的易感性,还是通过促炎细胞因子(包括IL-1β和IL-18)的失调释放。
同样,NLRP1具有感知细菌病原体外毒素的能力,如铜绿假单胞菌分泌的外毒素A和白喉棒状杆菌分泌的白喉毒素,并诱导细胞死亡和IL-1β / IL-18分泌。
注:NLRP1,核苷酸结合域和富含亮氨酸重复pyrin结构域的蛋白质1(NLRP1),一种在人体免疫系统中发挥作用的蛋白质。
银屑病皮肤中的多种真菌已被鉴定为通过遗传易感个体的先天免疫系统激活银屑病。
白色念珠菌
来自白色念珠菌等微生物的超级抗原可能导致感染患者银屑病的恶化。接触白色念珠菌也可在银屑病皮肤中引发对IL-17的临床相关反应。银屑病CLA + T细胞/表皮细胞共培养物通过增加IL-9、IL-17A和IFN-γ的产生,对白色念珠菌提取物产生反应。
此外,皮肤白色念珠菌感染通过产生IL-17的CD4 + TRM诱导复发性银屑病。在小鼠模型中,CD4 + TRM在感染30天后成为IL-17的主要来源。
除白色念珠菌外,马拉色菌可能与头皮银屑病的恶化有关。
幽门螺杆菌
与对照组相比,幽门螺杆菌感染在中度和重度银屑病患者中显著增加,但在轻度银屑病患者中没有增加。在幽门螺杆菌感染的银屑病患者中,银屑病面积和严重程度指数(PASI)评分较高,银屑病相关细胞因子IL-1β、IL-6、IL-8和TNF-α的粘膜水平也较高。然而,2015年的一项发现表明,银屑病患者的幽门螺杆菌患病率没有比健康对照组增加。还需进一步研究。
目前,许多研究都致力于人类微生物组在银屑病发病机制中的作用,特别是皮肤和肠道微生物组之间的关系,即“肠道-皮肤轴”。
银屑病患者厚壁菌门增加
几位研究人员推测,银屑病可能与宿主皮肤微生物群的失调密切相关(图2)。与非病变皮肤和对照组相比,银屑病病变皮肤的细菌载量更高,但细菌多样性更低。厚壁菌门和放线菌门分别是银屑病患者和健康对照组中最常见的细菌门,病变皮肤中厚壁菌的增加和放线菌的相应减少是显著的。然而,另一项研究报道了银屑病病变中放线菌门和厚壁菌门都增加。这种差异可能是由于采样方法、皮肤部位、药物和分析方法的多样性。
棒状杆菌丰度与银屑病严重程度相关
根据新的证据,与未受影响和健康的皮肤相比,银屑病病变的棒状杆菌(Corynebacterium)浓度更高,Cutibacterium更低。棒状杆菌丰度与疾病严重程度相关,大多数种类的棒状杆菌在小鼠皮肤中诱导强烈的IL-23依赖性反应。在小鼠皮肤上涂抹假白喉棒状杆菌后,皮肤IL-1β蛋白水平升高,真皮中γδT17细胞增多。
银屑病耳朵皮肤显示葡萄球菌过度表达
较低丰度的表皮葡萄球菌和痤疮丙酸杆菌可能促进金黄色葡萄球菌在银屑病中的定植,这可以刺激小鼠模型中的Th17极化并引发IL-17介导的皮肤炎症。
为了解释银屑病的发病机制,提出了从屏障破坏到微生物群紊乱,再到病变加重的循环来解释银屑病的发病机制。
具有表皮屏障缺陷的小鼠具有增加的细菌载量和抗微生物肽(AMP)表达。在施用局部抗生素后,通过减少皮肤上的细菌负荷,以及减少IL-17和IL-22的产生,可以缓解小鼠的银屑病样表型。
除了皮肤微生物群的微生态失调外,紊乱的肠道微生物群也会影响银屑病的病理生理学(图3)。与健康对照组相比,银屑病患者的肠道微生物群在组成和功能潜力方面都发生了变化。银屑病患者的肠道微生物群特征显著紊乱,细菌多样性低,厚壁菌门/拟杆菌门(F/B)比率升高,并与PASI评分呈正相关。除了厚壁菌门和拟杆菌门外,银屑病患者和健康对照组16种属水平上的类群也存在显著差异。
银屑病患者肠道微生物的相关研究
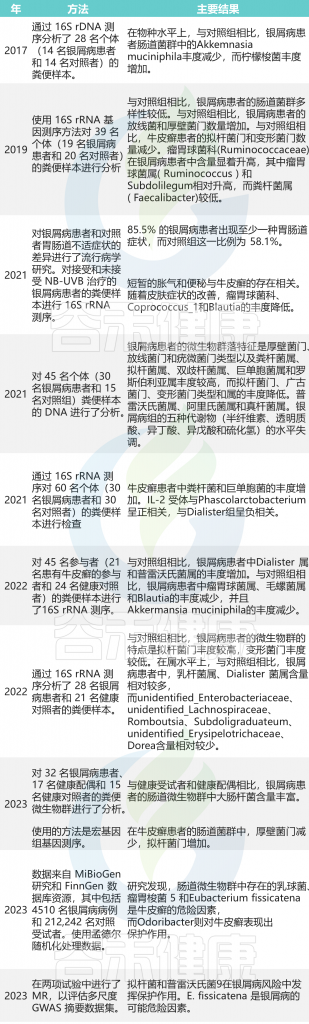
doi.org/10.3390/ijms25041984
肠道屏障完整性与银屑病严重程度呈正相关
肠道脂肪酸结合蛋白(FABP)是肠道屏障完整性的生物标志物,其水平与银屑病的严重程度呈正相关。肠道微生物群失调可能通过减少粘液层的厚度、干扰肠道上皮细胞的增殖和代谢以及影响AMPs的产生来增加肠道通透性,也称为“肠漏”。
肠道微生物失调导致肠漏,促进细菌和抗原转移
肠道细菌可以通过DC通过上皮细胞之间的过程逃逸到血液中,而不影响紧密连接功能,或者通过覆盖在Peyer贴片上的微折叠细胞,将微生物产物呈递给APC。渗漏的肠道促进细菌移位,并允许外部抗原从肠腔进入血液和淋巴循环,从而驱动局部和全身免疫反应。
银屑病患者中细菌DNA易位与全身炎症的增加
与其他患者和健康对照组相比,斑块型银屑病患者血液样本中细菌DNA易位增加,主要是由肠道细菌引起的,包括大肠杆菌、粪肠球菌和弗氏志贺菌。细菌DNA易位的患者也表现出更高水平的全身炎症反应。
另一项研究还报道,在25%的斑块型银屑病患者的血液中观察到细菌DNA,与其他肠道类型的患者相比,肠型2(普雷沃氏菌占优势)的患者更容易发生细菌移位。这些微生物在被重新激活后可能会释放出高效的炎症因子,如脂多糖(LPS)和脂磷壁酸(LTA),这可能会导致宿主机体中的轻度和慢性炎症,银屑病患者会受此困扰。从肠道吸收的细菌内毒素(ET)和PGs也会加剧银屑病,银屑病的治疗已通过阻止其吸收或破坏内毒素来证明这一点。
短链脂肪酸促进Treg分化,调节免疫活性
微生物群可以通过肠道中的微生物代谢产物来改变免疫活性。短链脂肪酸(SCFAs)是肠道微生物组不可消化碳水化合物的主要发酵产物,主要包括乙酸盐、丁酸盐和丙酸盐。其中,丁酸盐可增强Foxp3基因座启动子区的组蛋白H3乙酰化,表明其有可能影响Treg细胞的分化。
微生物群对T细胞分化的影响:叶酸与色氨酸代谢途径
叶酸来自肠道微生物群和饮食,而饮食中的叶酸对维持Foxp3+Tregs有选择性作用。作为宿主色氨酸代谢途径之一,犬尿氨酸途径可以通过吲哚胺2,3双加氧酶将成熟的DC转化为耐受性DC,从而增强Tregs并抑制效应T细胞。这些结果可能表明,微生物群代谢产物通过触发肠道T细胞的分化,成为银屑病的非感染性风险因素。
固有淋巴细胞ILC3的调控:微生物代谢产物的双重作用
近年来,第3组固有淋巴细胞(ILC3)的功能受到了广泛关注。ILC3主要在肠道和皮肤中发现,并通过产生IL-17A和IL-22在银屑病中发挥致病作用。
当身体感染某些细胞外病原体(如柠檬酸杆菌)时,ILC3产生IL-22和/或IL-17,用于对抗病原体的粘膜免疫。ILC3的功能也可以受到微生物代谢产物的调节,如短链脂肪酸。丁酸盐可由厚壁菌门产生,而乙酸盐和丙酸盐主要由拟杆菌门产生。
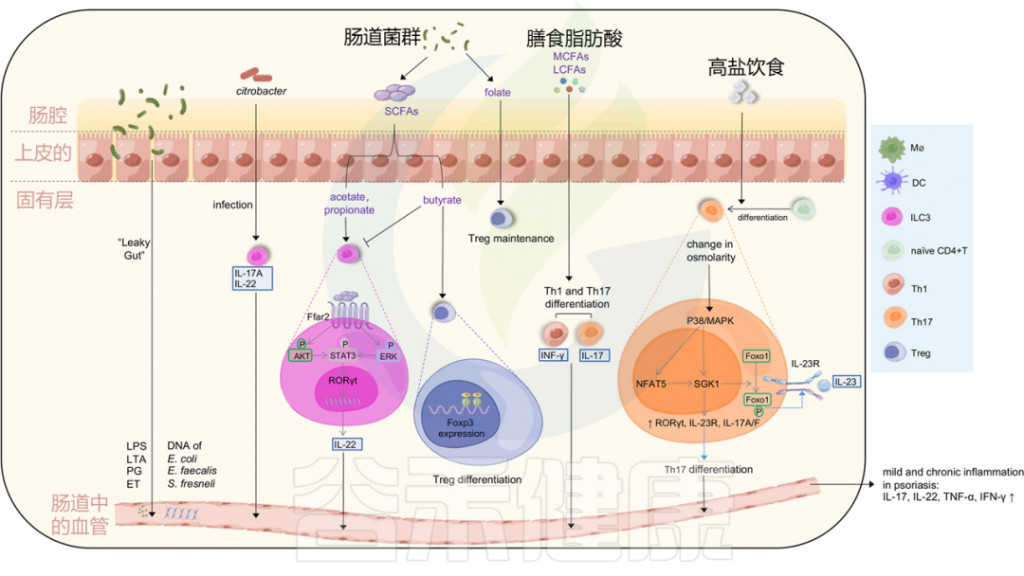
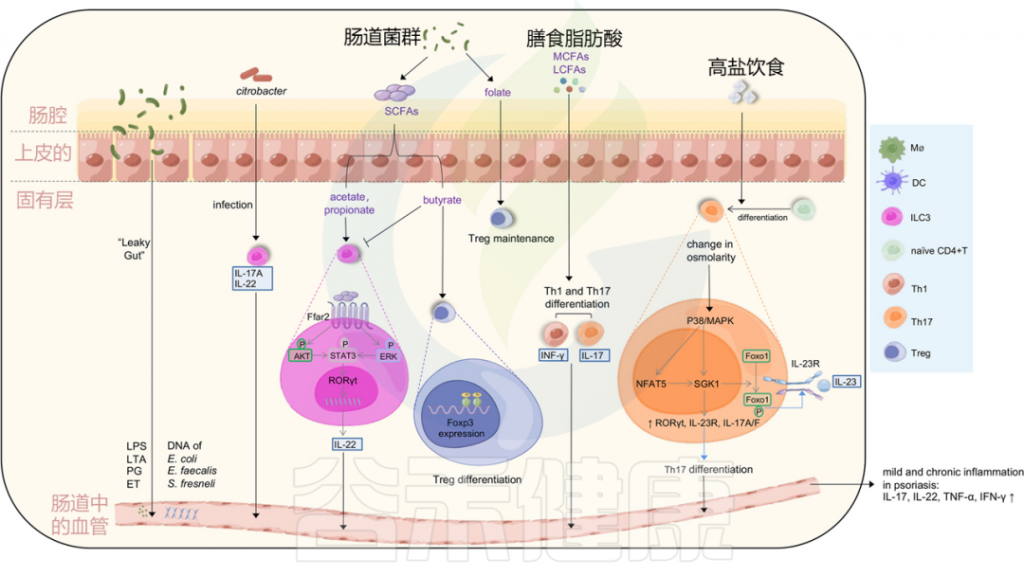
图3 肠道微生物失调和饮食可能会在银屑病中诱导轻度和慢性炎症
Liu S, et al., Cell Communication and Signaling, 2024
肠道通透性增加导致的“渗漏性肠病”可以诱导脂多糖(LPS)、脂蛋白(LTA)、外毒素(ET)和肽聚糖(PG)等强效炎症介质的释放,以及肠道细菌DNA进入血液。
柠檬酸杆菌感染可以刺激ILC3s产生IL-22和IL-17A,从而有助于黏膜免疫。ILC3s的功能也受到微生物代谢产物短链脂肪酸(醋酸、丁酸和丙酸)的影响。
乙酸和丙酸与结肠ILC3s上的FFAR2受体相互作用,激活AKT或ERK信号通路,并通过STAT3轴释放IL-22;
而丁酸则降低ILC3s的数量,同时,丁酸增强Treg细胞的分化,叶酸有助于维持Treg细胞,中长链脂肪酸支持Th1和Th17细胞的分化。
高盐饮食导致渗透压改变激活P38/MAPK通路,进而上调下游靶点NFAT5和SGK1,这反过来驱动转录因子RORγt、IL-23R、IL-17A和IL-17F的表达,导致Th17分化。上调的SGK1通过磷酸化Foxo1促进IL-23R的表达和稳定Th17分化。
益生菌的治疗已证明在改善银屑病方面具有潜在的益处,尽管尚未制定标准化的治疗方法。粪菌移植提供了另一种可能的治疗策略,因为它们通过允许健康粪便微生物组的“真生物”在受影响患者的肠道中重新定居来缓解自身免疫性疾病。未来更好地了解微生物群失调无疑将有助于缓解银屑病的治疗方法,我们在后面第八章也有具体的介绍。
许多研究已经表明肥胖和血脂异常与银屑病的关系,肥胖是银屑病的一个重要风险因素。而且,肥胖会加重已有的银屑病,这种自身免疫性疾病与肥胖之间的可能联系依赖于脂肪组织。
一般来说,脂肪组织可能通过肥大脂肪细胞分泌大量激素和细胞因子(也称为脂肪因子),包括IL-6、TNF-α和瘦素,在脂质代谢失调的患者中充当免疫器官,这些因子调节炎症途径和免疫细胞的活动。各种银屑病RNA-seq数据集表明,脂质代谢途径与银屑病的发病机制密切相关。
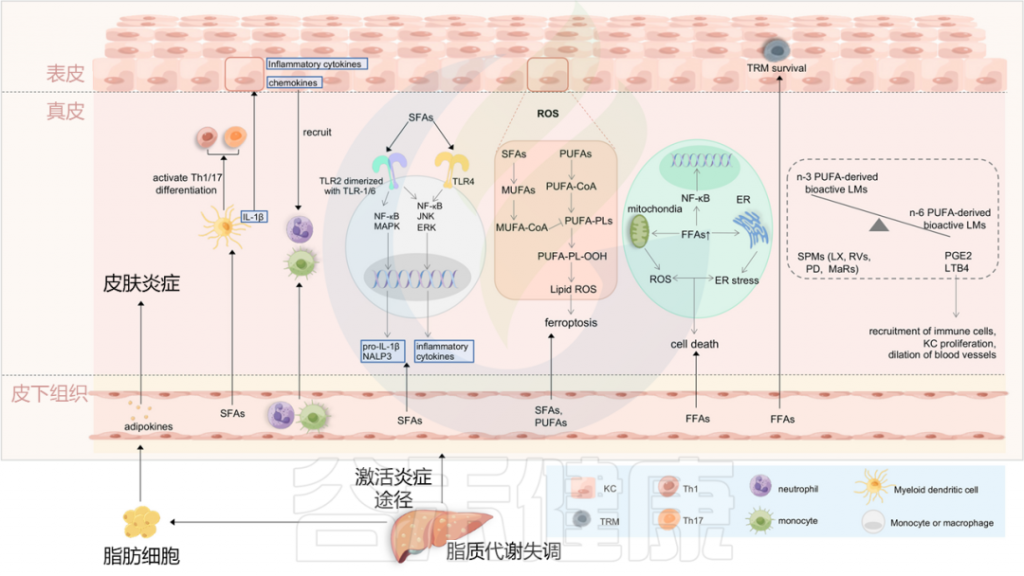
图4 将血脂异常与银屑病联系起来的潜在机制
Liu S, et al., Cell Communication and Signaling, 2024
最近的研究表明,与肥胖相关参数无关的饮食成分,可能在银屑病的恶化中发挥关键作用。一项使用小鼠银屑病模型的研究提供了证据,证明饮食中的游离脂肪酸(FFAs),特别是饱和脂肪酸(SFAs),是银屑病皮炎的关键放大器。
饱和脂肪酸:加重银屑病皮炎的可能潜在机制
循环中的饱和脂肪酸被转运到皮肤中,并诱导骨髓源性树突细胞产生各种促炎细胞因子,如IL-1β。这些促炎细胞因子随后促进角质形成细胞分泌趋化因子和炎性细胞因子,导致中性粒细胞和单核细胞募集到皮肤,并导致银屑病皮炎放大。
饱和脂肪酸还可以通过激活TLR2和TLR4,来调节单核细胞或巨噬细胞中的NALP3炎症小体和炎症小体介导的IL-1β分泌。饱和脂肪酸在银屑病皮炎恶化中的另一种机制是通过激活DC来促进Th1/Th17分化。
体内游离脂肪酸的增加可能通过支持表皮中TRM细胞的存活而促使银屑病的复发。此外,膳食游离脂肪酸、中链和长链脂肪酸(MCFA和LCFA)的成分指导肠形Th细胞分化,这与上述丁酸盐诱导的Treg分化相反(图3)。
多不饱和脂肪酸(PUFA)及其衍生的生物活性脂质介质
除饱和脂肪酸外,多不饱和脂肪酸(PUFA)和多不饱和脂肪酸衍生的生物活性脂质介质(LMs)也可介导银屑病的炎症反应。
其中,生物活性LMs来源于两种多不饱和脂肪酸,亚油酸(LA,n-6 PUFA)和α-亚麻酸(ALA,n-3 PUFA),它们分别因其在银屑病中的促银屑病和抗炎特性而闻名。
n-6
作为代表性的n-6 多不饱和脂肪酸衍生的LMs,LTB4有助于中性粒细胞趋化,PGE2有助于角质细胞增殖。
n-3
衍生自 n-3 多不饱和脂肪酸的专门的促分解脂质介质(SPMs),包括脂氧素(Lxs)、resolvins (Rvs)、保护蛋白(PD) 和Maresins (MaRs),在银屑病中具有抗炎和免疫调节功能。
一个研究小组专注于基于液相色谱-串联质谱(LC–MS/MS)分析鉴定人类银屑病中的生物活性LMs和SPMs。根据他们的研究,衍生自n-6 多不饱和脂肪酸的生物活性LMs在银屑病皮肤中丰富,同时resolving D1(RvD1)、resolving D5(RvD5)、保护蛋白D1(PD1)及其双加氧异构体10S,17S diHDHA(又名PDx),阿司匹林触发形式的脂氧素A4和脂氧素B4(AT-LXA4和AT-LXB4)可能是解决银屑病病理生理学中炎症反应的专门的促分解脂质介质。
脂质代谢与铁死亡(Ferroptosis)密切相关,铁死亡促进银屑病角质形成细胞引发炎症,这涉及一系列连续事件,即活性氧(ROS)的积累导致脂质过氧化并进一步诱导铁死亡。
PUFA促进银屑病角质形成细胞铁死亡和炎症的机制
在银屑病期间,脂质过氧化与Th22/Th17通路在单细胞水平上呈正相关,证明了脂质过氧化的增强。
角质形成细胞对铁死亡也具有时间和浓度依赖性。在角质形成细胞的脂质代谢中,循环中积累的PUFA被催化为关键底物PUFA-CoA,最终酯化为PUFA-PLs,当存在生物活性铁时,PUFA-PL-OH可以过氧化为PUFA-PL-OH。随后,PLOOH可以通过产生脂质羟基自由基和脂质过氧自由基使细胞对铁死亡敏感。
MUFA-CoA和Fer-1通过抑制脂质过氧化抑制银屑病铁死亡
相反,来自饱和脂肪酸的单不饱和脂肪酸(MUFA)的产物MUFA-CoA可以通过抑制PUFA-PLs的过氧化来减少脂质过氧化的可用底物,从而抑制铁死亡。
此外,各种研究表明,Ferrostatin-1(Fer-1)是一种有效的脂质过氧化抑制剂,可以抑制铁死亡并阻断银屑病中的炎症反应。
除了氧化应激外,脂质还可以启动内质网(ER)应激,这具有双向作用:
饱和游离脂肪酸通过诱导ROS和ER应激参与银屑病发病机制
在非脂肪细胞中,过量的饱和游离脂肪酸通过脂质代谢和信号通路诱导ROS和ER应激。随后的线粒体和ER功能障碍是导致终末细胞死亡的关键步骤。此外,长期的内质网应激可导致氧化应激,脂质诱导的ROS也可能间接触发内质网应激,尽管确切机制尚不清楚。
脂质抗原激活限制性T细胞促进银屑病炎症反应
脂质自身抗原在驱动血脂异常相关自身免疫性疾病中的作用也引起了关注。银屑病病变含有高水平的磷脂酶A2(PLA2),其参与新脂皮肤抗原的产生。在IFN-α的诱导下,细胞质PLA2组IVD(PLA2G4D)可以以外泌体的形式从银屑病肥大细胞中释放,并转移到邻近的表达CD1a的Langerhans细胞。然后,新脂质抗原被脂质特异性CD1a反应性T细胞识别,释放IL-22和IL-17A。
自身脂质反应性T细胞在高脂血症与银屑病关联中的角色
除了CD1a限制性T细胞外,其他CD1分子(如CD1b和CD1c)限制性T淋巴细胞也对自身脂质产生反应并诱导细胞因子的产生。
在一项研究中,通过皮肤病变中积累的磷脂和胆固醇的一些自身抗原直接激活了CD1b自身反应性HJ1 T细胞。在患有高脂血症血清的小鼠中,CD1b+树突细胞增加了IL-6的产生,以及HJ1 T细胞分泌IL-17A,表明高脂血症和银屑病之间的潜在联系可能在于自身脂质反应性T细胞。
心理压力与银屑病的发病、严重程度和复发之间可能存在相关性
在31-88%的患者报告压力是银屑病的诱因,在过去12个月内经历压力事件的受试者中,银屑病的发病率更高。
另一项病例对照研究利用Holmes和Rahe的社会适应评定量表来评估压力生活事件,得出结论,压力在银屑病的发展中起着重要作用,特别是在复发和延长方面。
然而,一项荟萃分析报告称,没有令人信服的证据表明应激事件与银屑病之间存在这种关联。因此,未来应在基于人群的研究中前瞻性地审查这种关系,利用标准化的压力测量工具,并结合额外的生理和生化压力标志物。
心理压力激活HPA轴促进银屑病发病
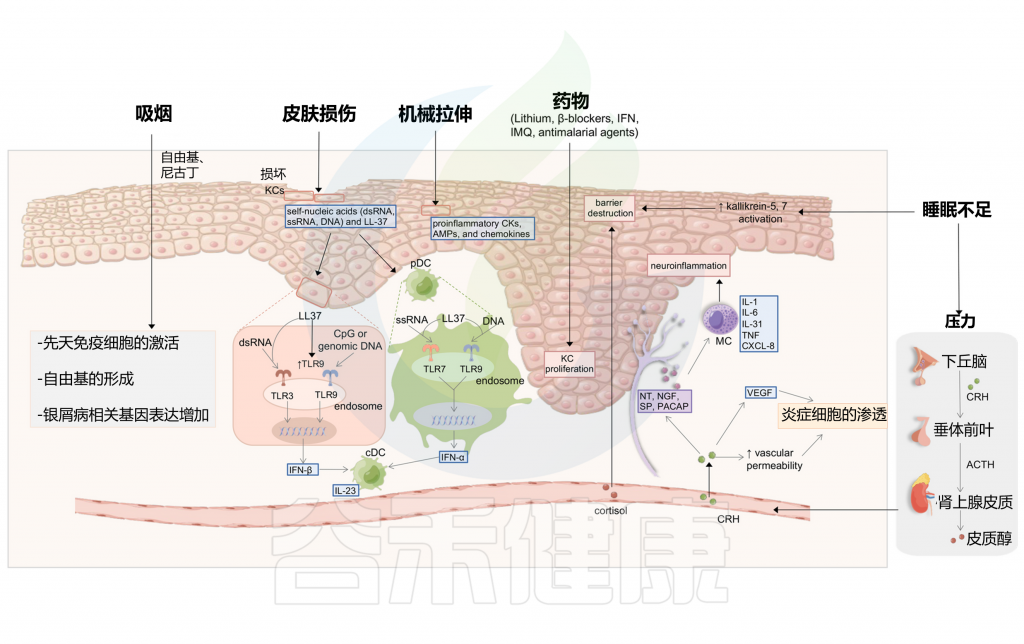
压力可能通过下丘脑-垂体-肾上腺(HPA)轴、免疫途径和外周神经系统在银屑病的病理生理学中发挥作用。(图5)
作为对心理压力的反应,下丘脑产生促肾上腺皮质素释放激素(CRH),进一步激活垂体促肾上腺皮质激素(ACTH)和肾上腺皮质醇的分泌。CRH能够抑制角质细胞的凋亡,这是银屑病的典型现象。
另一方面,CRH通过刺激血管内皮生长因子(VEGF)增强血管生成,并增加血管通透性,促进银屑病斑块中炎症细胞的渗透。肥大细胞(MC)也可以被CRH激活,然后释放细胞因子和趋化因子,包括IL-1、IL-6、IL-31、TNF和CXCL-8。
此外,压力刺激皮肤外周神经末梢神经肽的释放,导致MC激活后神经源性炎症的发展。这些神经肽包括神经降压素(NT)、物质P(SP)、神经生长因子(NGF)和垂体腺苷酸环化酶激活多肽(PACAP)。
重度抑郁、PTSD、焦虑
除压力外,重度抑郁障碍或创伤后应激障碍患者患银屑病的风险显著高于对照组。
甚至父母常见的精神障碍(焦虑和抑郁)与后代患银屑病风险之间的关系也已确定。
双相情感障碍
另一项研究报告称,一名患有双相情感障碍的女性随后发展为银屑病,并在每次躁狂发作期间银屑病病变加重。
自闭症
根据自闭症谱系障碍患者银屑病炎症的临床升高,自闭症小鼠模型中高水平全身炎症,表明自闭症与银屑病活动之间存在联系。此外,先前的研究已经证实,严重精神障碍和银屑病之间存在遗传重叠。
越来越多的研究阐明了性激素对皮肤的多种生物和免疫调节作用。银屑病的自然病程似乎受到妊娠、月经和更年期的调节,从而暗示女性激素诱导的机制可能参与调节皮肤炎症。此外,研究表明,与女性相比,男性银屑病的患病率和严重程度更高,尤其是在雌激素充足的年龄,这表明不同性激素对银屑病的调节作用不同。
雌激素对银屑病具有保护作用
研究发现,雌激素通过下调中性粒细胞和巨噬细胞产生的IL-1β,这一过程通过雌激素受体α和β(ERα和ERβ)介导,具有潜在的抗银屑病作用。
同样,一项体内研究表明,雌二醇通过调节中性粒细胞和巨噬细胞的功能,在咪喹莫特(IMQ)诱导的小鼠银屑病炎症中发挥保护作用。体外,17β-雌二醇阻断了10 kDa的IFN-γ/干扰素诱导蛋白(IP-10)的正反馈回路,支持银屑病中Th1介导的炎症。
雌激素在银屑病中也可能具有促炎特性
一些孕妇的银屑病症状有所改善,而另一些孕妇的症状则有所恶化。
一份病例报告表明,一名患者在接受三苯氧胺治疗(一种抗中风药物)后,银屑病症状得到缓解,但在围绝经期症状恶化。值得注意的是,与对照组相比,男性银屑病患者的血清雌二醇水平显著升高,这表明雌激素可能参与银屑病的发展。
此外,一项使用咪喹莫特诱导的银屑病模型的体内研究也表明,雌激素通过Erα诱导IL-23,在银屑病中发挥促炎作用。
总之,这些证据支持雌激素在特定情境下对银屑病有双重影响,这导致了偶尔出现的相互矛盾的观察结果。
孕激素在银屑病中具有保护作用
临床观察证明银屑病通常在妊娠期间改善或消退,但在分娩后再次出现。
一项病例对照研究确定了孕妇受影响体表面积的改善与雌二醇、雌三醇、雌激素与孕酮比例升高之间的相关性。一些研究人员已经证明,角质细胞通过在银屑病皮肤中表达孕酮受体(PR)而成为孕酮的靶标。此外,孕酮在妊娠期间诱导转录改变,这些改变富含与银屑病相关的基因。STAT1和STAT3显著下调,其下游靶点,包括IL-12β、OSM和CXCL10,受到影响。
睾酮
一些研究强调雄性激素在牛皮癣中的作用。他们表明,严重的牛皮癣与低血清睾酮水平有关。无论患者年龄(40 岁以上或以下)如何,总睾酮和游离睾酮与 PASI 之间均呈负相关。
睾酮可以作为一种免疫抑制因子,下调树突状细胞的活性,干扰B细胞的分化,减少促炎细胞因子的释放。此外,在动物模型中,睾酮可以通过降低 IL-17 的水平来充当肝脏炎症的抑制剂,IL-17 是一种已知在银屑病发展中发挥关键作用的白细胞介素。
雄激素剥夺疗法(ADT)在晚期前列腺癌中作为加剧或缓解银屑病因素
一份病例报告显示一名前列腺癌患者ADT后银屑病加重。相反,一项调查发现ADT与银屑病风险降低之间存在相关性。另一项研究显示,无论年龄组如何,总睾酮或游离睾酮与PASI之间存在显著的负相关。
催乳素:刺激角质形成细胞的增殖
催乳素是垂体前叶分泌的一种多肽激素,刺激角质形成细胞的增殖,充当血管生成的诱导剂,并促进 Th1 细胞浸润银屑病病变。
此外,催乳素在调节免疫反应方面具有复杂的作用。它可以作为体液和细胞免疫反应以及 Th1 和 Th17 反应的刺激剂。
催乳素可以刺激角质形成细胞的增殖。最近的一项荟萃分析支持了激素在银屑病发病机制中发挥重要作用,该分析评估了循环催乳素水平与银屑病严重程度之间的关系。该荟萃分析包括 12 项研究,总共涉及 446 名银屑病患者和 401 名健康受试者。银屑病患者的循环催乳素水平显著较高,并且与疾病严重程度呈正相关。
总之,目前探索性激素对银屑病影响的研究主要依赖于观察性研究,缺乏深入的机制探索。这些关于雌激素和雄激素的矛盾发现表明,需要更多高质量的证据来更好地理解性激素与银屑病发病机制之间的复杂联系。
一些触发因素的潜在机制无法归类为感染因素、皮肤微生物群失调、肠道微生物群失调或脂质代谢失调,如下图。
图5 与银屑病发生相关的其他诱因
Liu S, et al., Cell Communication and Signaling, 2024
科布内氏现象与银屑病:皮肤损伤诱发疾病
皮肤创伤或压力可引发银屑病,称为科布内氏现象(Koebner phenomenon,KP)。
注:科布内氏现象,也称同形反应,是指在某些皮肤病患者健康皮肤区域受到损伤后出现的与原发皮肤病相同的皮损。
拔罐疗法与银屑病:传统治疗方法的争议
拔罐疗法作为一种传统的中医药,曾被用于治疗银屑病,但现在却存在争议,因为一些银屑病患者通过同形反应产生局部皮肤病变,而没有达到预期的治疗效果。
在银屑病患者中,拔罐治疗会导致拔罐部位出现同形反应,而Hijama(中东国家进行的一种湿拔罐)只会导致切口区域出现同形反应。
皮肤损伤激活角质细胞和免疫细胞参与银屑病发病
在皮肤损伤过程中,受损的角质细胞释放自身核酸,包括dsRNA、单链RNA(ssRNA)和DNA,并诱导LL-37的表达。
LL-37能够通过TLR7或TLR9在浆细胞样树突状细胞(pDC)中识别ssRNA或DNA,这最终导致IFN-α的分泌。LL-37暴露也可以通过DNA-LL-37复合物非依赖性机制或通过TLR3对dsRNA的识别诱导IFN-β的产生。对于前一种机制,LL-37增加TLR9的表达,从而促进TLR9配体的识别,如CpG或基因组DNA。浆细胞样树突状细胞的IFN-α和角质细胞的IFN-β促进常规树突状细胞的成熟。银屑病在创伤部位的复发归因于创伤部位TRM细胞的积聚和再激活。
机械拉伸与皮肤损伤:银屑病病变潜在触发因素
一份病例报告描述了一名患寻常型银屑病的妇女在插入组织扩张器后发展出新的银屑病病变。机械拉伸被怀疑会触发角质细胞释放ATP(5’-三磷酸腺苷),并随后产生Th17极化细胞因子,如前IL-1β和IL-6。被释放的ATP也可以激活表皮兰氏细胞。
在小鼠皮肤扩张模型中,观察到表皮过度增殖、皮肤屏障功能受损以及表皮角质细胞中银屑病相关细胞因子的上调。在人类角质细胞中,连续拉伸可以导致银屑病相关促炎细胞因子、抗微生物肽和趋化因子的产生。
除了拉伸,角质细胞的抓伤损伤可以通过细胞因子或趋化因子CCL20触发科布内氏现象,在较小程度上,这种触发作用与抓痕线数有关,也与CXCL8有关。
吸烟强度和持续时间与银屑病有关
与普通人群相比,银屑病患者中吸烟患病率更高,并揭示了吸烟开始和戒烟对银屑病的因果影响。吸烟强度和持续时间可能对银屑病的发病率具有剂量依赖性影响。作为银屑病发展的一个独立风险因素,吸烟对银屑病患者有许多负面影响,包括较高的PASI评分、指甲受累增加和心血管疾病的发展。
吸烟可能通过炎症、氧化和遗传机制引发银屑病
尼古丁通过释放炎性细胞因子刺激先天免疫细胞,如DC、巨噬细胞和角质细胞。此外,吸烟会引发自由基的形成,从而激活银屑病相关的蛋白质信号通路。
吸烟上调银屑病相关基因表达
在遗传学方面,吸烟上调银屑病相关基因的表达,包括HLA-C*06:02、HLA-DQA1*0201和CYP1A1。
烟草与银屑病:保护作用or风险因素?
最近的一项研究阐明了烟碱受体基因CHRNA5在银屑病的发展和发病机制中的作用。沉默的CHRNA5可以抑制人类角质细胞的增殖和迁移。有趣的是,吸烟也会增加普通人群患银屑病的风险,但吸烟在银屑病患者中表现出保护作用,这被称为“吸烟悖论”。然而,最近的一项孟德尔随机化研究涵盖了105912名具有生活方式因素、生物化学和基因型数据完整信息的个体,该研究表明吸烟是银屑病的一个独立风险因素,但不是银屑病的因果风险因素。
睡眠障碍:促炎因子显著增加,影响表皮屏障,加剧银屑病
睡眠障碍通常是银屑病的危险因素之一。一个具有全国代表性的基于人群的数据集表明,当发生阻塞性睡眠呼吸暂停时,银屑病和精神分裂症的风险增加。睡眠不足可能通过失眠的心理压力改变屏障稳态和角质层完整性。研究人员发现,银屑病小鼠在睡眠不足后,促炎细胞因子(IL-1β、IL-6和IL-12)显著增加,抗炎细胞因子(如IL-10)减少。
睡眠不足也促进了银屑病皮肤中kallikrein-5和kallikrein-7的活性,从而影响表皮屏障,导致银屑病的发展。此外,皮质醇在失眠等一些睡眠障碍中会增加。皮质醇刺激皮肤MC,破坏皮肤屏障功能,并上调促炎细胞因子,从而进一步加剧银屑病。
饮食因素在银屑病发病机制中的作用
73%的患者在坚持无麸质饮食三个月后出现临床改善,银屑病真皮中的Ki67淋巴细胞也减少了。
除麸质外,氯化钠(NaCl)摄入量的增加被认为对银屑病的发病机制有潜在影响(图3)。在高盐条件下,活化的p38/MAPK通路可以上调下游靶向活化T细胞核因子5(NFAT5)和血清/糖皮质激素调节激酶1(SGK1)。靶基因的上调可以驱动转录因子RORγt、IL-23R、IL-17A和IL-17F的表达,从而导致银屑病Th17细胞从初始CD4 + T细胞分化。SGK1对于通过Foxo1的磷酸化促进IL-23R表达和稳定Th17细胞分化至关重要。
银屑病与饮酒之间存在着复杂的多因素关系
银屑病患者的过度饮酒率高于普通人,酗酒会增加银屑病的严重程度并降低治疗效果。中重度银屑病患者的死亡风险也会增加,酒精是一个主要因素。然而,一项调查报告称,饮酒与银屑病的发展没有显著联系,孟德尔随机化研究也没有发现饮酒与银屑病之间的因果关系。目前还没有足够的证据来确定饮酒是否与银屑病的发病和复发有关。
许多药物都能引发银屑病,如锂、β受体阻滞剂、抗疟药、非甾体抗炎药、血管紧张素转换酶抑制剂、IFN、IMQ、特比萘芬、他汀类药物、贝特类药物和抗程序性细胞死亡蛋白1(PD-1)或抗程序性死亡配体1(PD-L1)抗体。在罕见病例中,TNF抑制剂也可能自相矛盾地诱发银屑病。
银屑病是锂的最常见皮肤不良反应
锂诱发和加重银屑病的发病率范围从3.4%至45%不等。
β受体阻滞剂治疗引发的角质细胞过度增殖及T细胞活性变化
当用β受体阻滞剂治疗时,负责促进细胞分化和抑制增殖的细胞内信使CAMP在表皮显示减少,最终导致角质细胞过度增殖。
此外,银屑病T细胞与对照组在蛋白酪氨酸磷酸化活性方面存在重要差异,蛋白酪氨酸激酶的诱导对包括淋巴细胞和角质细胞在内的细胞的激活和增殖至关重要。
抗PD-1/PD-L1诱导银屑病及潜在疗法
随着抗PD-1或PD-L1抗体在晚期恶性肿瘤治疗中的应用迅速增长,抗PD-1/PD-L1诱导的银屑病病例逐渐被报道。有研究者认为,PD-1的抑制通过加速表皮CD8 + 的浸润而促进皮肤炎症参与与角质细胞致病性串扰的T细胞。他们进一步证明了IL-6靶向疗法对抗PD-1/PD-L1诱导的银屑病的潜在疗效。
其他药物也通过不同的机制与银屑病有关
银屑病也可以由生物制剂引发
这被认为是一种自相矛盾的反应。一项研究显示,216例疑似TNF抑制剂诱导或加重的银屑病报告病例,英夫利昔单抗治疗银屑病的发生率更高,在克罗恩病和类风湿关节炎治疗的第一年最为普遍。对TNF抑制剂诱导的银屑病患者的回顾性分析也得出了一致的结果,表明英夫利昔单抗是主要的触发因子,而克罗恩病和类风湿关节炎是最常见的原发性疾病。这种自相矛盾的反应可能与通过抑制易感个体TNF活性而诱导的免疫改变有关。其发病机制也与IL-23/Th17轴参与TNF抑制的设定有关。
其中一个悬而未决的重大谜团是,在靶向TNF-α、IL-23和IL-17A/IL-17RA的生物制剂停用后,银屑病病变往往在相同的区域复发。目前最流行的观点是,现有生物制剂主要用于抑制致病性免疫细胞的活性,而不是完全消除它们。
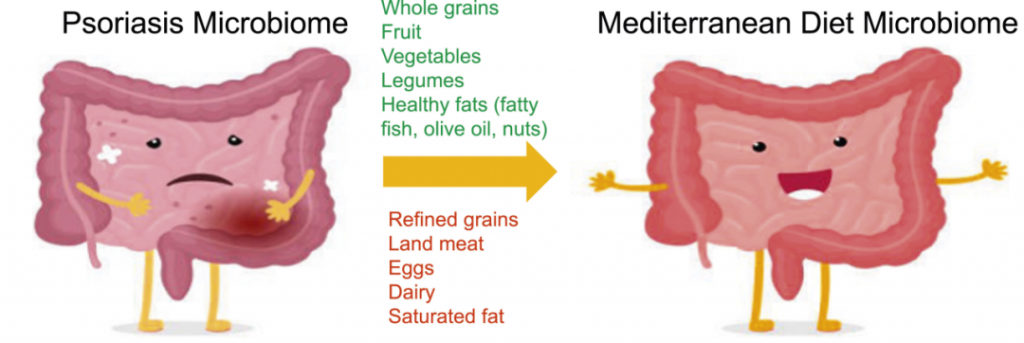
地中海饮食(MeD),因为它具有抗炎作用。重点是增加蔬菜、橄榄油和豆类等富含营养和抗氧化剂的食物的消费,同时限制肉类和奶制品的摄入。
一项针对 3557 名银屑病患者的队列研究发现,与地中海饮食更一致的饮食模式与较低的银屑病严重程度相关。
一种方式是通过增加拟杆菌门细菌来降低F/B比例,从而帮助恢复短链脂肪酸的平衡,并促进丁酸盐的产生,这反过来又可以减轻肠道和全身炎症,对牛皮癣具有重要影响。
肠道中其他产丁酸菌包括Akkermansia和普拉梭菌,地中海饮食通过增加这些细菌也促进了短链脂肪酸的产生。
doi.org/10.1177/24755303241226626
食用特级初榨橄榄油含有高含量的多酚,已在健康患者中显示出能减少IFNy和IL7R的基因表达,表明减少银屑病患者炎症的潜在途径。
间歇性禁食可能为难以遵循低热量饮食的患者提供另一种策略。尽管关于这种饮食的研究仅限于斋月禁食,这增加了几个混杂因素,但总的来说有益处。以减重为重点的饮食改善可能的原因可能是由于腹部脂肪和脂肪率的减少,随后降低脂肪因子水平并减少银屑病进展所依赖的炎症。
血清脂肪因子之一的脂联素与PASI评分呈正相关,IL-22也是如此。肥胖加剧银屑病的机制因此可能是由于脂肪因子诱导Th-17相关细胞因子的增加。对于这些建议,应避免严重的饮食改变,以防止营养不良。低热量饮食和间歇性禁食可能推荐给有适当动机的患者。
无麸质饮食意味着避免摄入小麦、大麦和黑麦中的这种蛋白质,这对患者有益。银屑病患者食用无麸质饮食 3 个月后发表了积极结果,显著改善了PASI 评分。其他研究小组证实,一年的无麸质饮食可以改善抗麦胶蛋白肽 IgA 水平较高的群体的 PASI 评分。
高脂饮食破坏IL-23和胆汁酸信号通路的稳态,促进皮肤的γδT细胞浸润并增强其产生IL-17A的能力来诱发银屑病样皮炎。也会通过改变粘液屏障和肠道微生物群来加剧银屑病皮肤炎症,从而导致全身 IL-17 反应增强,从而加剧银屑病。
极低热量生酮饮食(VLCKD)可以显著减少炎症,是缓解肥胖银屑病患者症状的有效手段,可能与微生物群-肠道-皮肤轴有关,但无论短期还是长期都有一定的副作用。
鱼油已被加入到许多银屑病患者用来缓解症状的补充剂中。2014 年,对几项有关在银屑病患者中补充鱼油的研究进行荟萃分析发现,虽然一些研究显示了中等结果,但其他研究尚未发现任何相关性。
最近,在一大群个体(超过 25,000 名男女登记受试者)中,在他们的饮食中补充了维生素 D(2000 IU/天)和/或 omega-3 脂肪酸(1000 毫克/天),并且该组随访 5 年,记录了银屑病 与其他自身免疫性疾病的发病率。研究结果表明,在补充组中,包括银屑病在内的自身免疫性疾病的发病率降低了 22% 以上。
姜黄素是一种抗炎的天然化合物,口服后会在胃肠道中积聚,并可能通过调节肠道微生物群的微生物多样性和组成来发挥其调节作用。一项人类随机安慰剂对照试验,补充组每天接受6000 mg姜黄提取物,并在治疗开始时和8周后进行微生物群分析。大多数梭菌属、拟杆菌属、柠檬酸杆菌属、Cronobacter、肠杆菌属、肠球菌属、克雷伯菌属、拟副杆菌属和假单胞菌属在反应参与者中均匀增加。
产生丁酸的细菌数量和粪便丁酸水平增加,对银屑病患者口服补充姜黄素12周进行评估,结果PASI评分显著降低,IL-22血清水平降低。
在斑块型银屑病患者的局部光疗的同时口服姜黄素似乎可以诱导对治疗的更快、更渐进的治疗反应。考虑到这些炎症发病机制与银屑病受试者的发病机制相似,补充姜黄素可能代表了该病理管理的未来前景。
白藜芦醇是一种抗炎的非黄酮类多酚化合物。在小鼠实验中也发现了白藜芦醇对肠道菌群的有利效果。口服白藜芦醇能够增强肠道屏障功能,同时减少通透性和炎症。白藜芦醇治疗后肠道菌群拟杆菌属、Alistipes、Rikenella、Odoribacter、Parabacteroides和Alloprevotella分类的丰度水平增加,白藜芦醇治疗恢复了小鼠的菌群失调。
此外,白藜芦醇的给药,8周内每公斤400毫克白藜芦醇,增加了高脂饮食喂养的大鼠中产丁酸菌Blautia和Dorea。因此,白藜芦醇补充可能改善患者肠道微生物多样性。
槲皮素是一种植物黄酮醇,它可能存在于各种水果、蔬菜、叶子、种子和谷物中。以其抗炎、细胞保护和免疫抑制特性闻名。
最近的一项研究针对亚甲基丙烯酰亚胺诱导的小鼠,探讨了槲皮素补充(30、60和120 mg/kg)的效果,显示PASI评分显著降低,银屑病斑块改善。此外,槲皮素成功降低了小鼠血清中的TNF-α、IL-6和IL-17水平,加强了抗炎效果。
此外,研究表明口服补充槲皮素,减少了亚甲基丙烯酰亚胺诱导的小鼠类银屑病样皮炎,显著降低了角质形成细胞的增殖和异常分化,以及炎症细胞的浸润。口服槲皮素后,观察到IL-23/Th17轴上的细胞因子表达降低和Th17细胞反应减少。
其他中草药如雷公藤等,也对银屑病患者有用,改善了他们的临床参数,可作为辅助治疗。
回顾性分析显示,83.7% 的银屑病患者在接受唾液链球菌K-12治疗 24 周后,PASI 评分改善了 100%,并且随着治疗持续时间的延长,疗效持续改善。
一项随机对照试验发现,持续口服婴儿双歧杆菌35624(B.fantis)可显著改善银屑病的进展,并降低C反应蛋白和肿瘤坏死因子TNF-α的表达,显示出免疫调节作用。人体微生物群的作用不仅限于粘膜免疫系统,还延伸到全身免疫系统。
在明确单一益生菌的作用机制后,益生菌的组合应用以及相应的标准和方法仍需探索。不同的饮食和环境,可能会导致肠道微生物群的差异。
一项为期12周的开放标签、单中心临床试验评估了益生菌[印度芽孢杆菌(HU36)、枯草杆菌(HU58)、凝结芽孢杆菌(SC208)、草绿芽孢杆菌(SL307)和克劳氏芽孢杆菌(SC109)]和精确益生元(低聚果糖、低聚木糖和低聚半乳糖)对接受局部治疗的银屑病患者的有效性。接受抗银屑病局部治疗和益生菌及益生元补充的患者,在疾病活动性的测量中表现更好,包括银屑病面积和严重性指数、皮肤病生活质量指数、炎症标志物和皮肤厚度。肠道菌群发生了有利的变化,转变为抗炎的特征。
喂食富含菊粉的高纤维饮食(HFD)降低了咪喹莫特诱导的皮炎的增厚和总严重程度评分,并降低了表皮厚度、炎症浸润,包括Ly6G+中性粒细胞和表皮Ki67+增殖细胞。
富含菊粉的高纤维饮食增加了拟杆菌门和拟杆菌属的相对丰度,增加了血清和粪便中丙酸盐的浓度。膳食菊粉补充剂部分通过丙酸盐改善银屑病样皮炎,可能是一种很有前途的银屑病辅助治疗方法。
当然,何时使用益生菌、益生元以及针对不同个体的精准应用,还需结合肠道菌群检测进一步研究。
FMT是纠正肠道菌群失调、重建肠道微生态平衡的方法。近年来,这种疗法已用于治疗牛皮癣、系统性红斑狼疮、肠易激综合征、帕金森病疾病等。
FMT治疗的效果取决于不同的疾病、移植的形式和数量、给药途径以及所使用的供体。
在一项为期五周的干预性临床试验中,一名患有斑块型银屑病和IBS的受试者通过内窥镜和结肠镜接受了两次FMT。身体表面积、PASI评分、皮肤病学生活质量指数、肠道症状和血清TNF-α水平在干预后都有所改善,没有观察到不良反应。
然而,在周围性银屑病关节炎患者中,FMT在治疗活动性疾病方面并不那么有效。FMT可能在减轻银屑病患者的疾病严重程度方面带来一些益处,但需要更多的临床试验来证明这一点。
其他相关预防干预措施,皮肤护理等详见我们之前的文章:
以上我们了解了银屑病发病和复发的危险因素和潜在病理机制。银屑病的发展是复杂的,可能是由多种触发因素引起的。这些触发事件可能在不同条件下独立发生,或者表现出累积或协同效应。因此,很难确切地将这种疾病归因于特定的诱因。
鉴于银屑病是由遗传基础上的环境风险因素引发的,疾病的预防和管理值得应有的重视。根据这些明确的触发因素,可以制定银屑病风险评估和疾病管理指南,有助于轻症或非典型病例的早期诊断和银屑病的精准管理。例如,感染史(不仅是化脓性链球菌感染,还包括这里列出的其他感染)、肥胖和高血脂水平、过度的心理压力、吸烟、睡眠障碍、高盐饮食、服用特定药物史都应被视为银屑病的风险因素。
从患者的角度来看,消除这些风险因素对于他们个人对疾病的管理至关重要。结合肠道菌群检测报告查看相关菌群超标或缺乏情况例如链球菌,AKK菌,产丁酸菌等,以及整体菌群平衡情况,对于疾病预警有着重要作用。通过及时调整生活方式、饮食习惯和适当药物治疗,可以有效地降低银屑病的发病风险,提高患者的生活质量。
从治疗角度来看,患者可能受益于早期治疗,包括但不限于结合菌群的抗生素治疗、标准化益生菌补充、抗高脂血症治疗等方式。了解触发因素在银屑病发病机制中的作用,与肠道菌群的关联,也将为开发针对银屑病发病和复发期间触发机制的新疗法提供线索。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Zhu Q, Wu K, Yang Q, et al. Advances in psoriasis and gut microorganisms with co-metabolites[J]. Frontiers in Microbiology, 2023, 14: 1192543.
Liu S, He M, Jiang J, et al. Triggers for the onset and recurrence of psoriasis: a review and update[J]. Cell Communication and Signaling, 2024, 22(1): 108.
Kranyak A, Haran K, Smith P, et al. The Mediterranean Diet as a Potential Solution to the Gut Microbiome Dysbiosis in Psoriasis Patients[J]. Journal of Psoriasis and Psoriatic Arthritis®, 2024: 24755303241226626.
Ryguła I, Pikiewicz W, Grabarek B O, et al. The Role of the Gut Microbiome and Microbial Dysbiosis in Common Skin Diseases[J]. International Journal of Molecular Sciences, 2024, 25(4): 1984.
Buhaș, M.C.; Candrea, R.; Gavrilaș, L.I.; Miere, D.; Tătaru, A.; Boca, A.; Cătinean, A. Transforming Psoriasis Care: Probiotics and Prebiotics as Novel Therapeutic Approaches. Int. J. Mol. Sci. 2023, 24, 11225.
Constantin, C.; Surcel, M.; Munteanu, A.; Neagu, M. Insights into Nutritional Strategies in Psoriasis. Nutrients 2023, 15, 3528.
Tampa, M.; Mitran, M.I.; Mitran, C.I.; Matei, C.; Georgescu, S.R. Psoriasis: What Is New in Markers of Disease Severity? Medicina 2024, 60, 337.
Zang C, Liu J, Mao M, Zhu W, Chen W, Wei B. Causal Associations Between Gut Microbiota and Psoriasis: A Mendelian Randomization Study. Dermatol Ther (Heidelb). 2023 Oct;13(10):2331-2343.
谷禾健康
链球菌咽喉炎是一种细菌感染引起的呼吸道疾病,可导致喉咙痛,喉咙痒。全世界每年有超过6亿人感染链球菌性咽喉炎。
链球菌咽喉炎是由化脓性链球菌(A族乙型溶血性链球菌)引起的,通常在患者咳嗽或打喷嚏时通过飞沫传播。
链球菌性咽喉炎的症状包括如下:
喉咙痛,扁桃体肿胀、发红,喉咙后面有白斑,发热,恶心想吐,头疼,浑身疼痛,皮疹等。
这些症状中有许多与病毒感染的症状类似。有这些症状的同时流鼻涕或咳嗽,更有可能是病毒感染,如普通感冒。
与普通感冒有所区分,最常见的链球菌咽喉炎症状是:突然出现喉咙痛,吞咽困难或吞咽困难,发烧以及扁桃体上有红斑。
链球菌咽喉炎的症状也可能与COVID-19的症状类似,COVID-19是由一种冠状病毒引起的。
如果因感冒引起喉咙痛,通常会在一两天后好转或消失。对于链球菌,喉咙痛持续存在,而且往往更加严重。
2019年2月发表在《科学转化医学》杂志上的一项新研究发现,基因变异和免疫力低下可能是一部分儿童反复遭受链球菌感染的原因。
当然,任何人都有可能患链球菌咽喉炎。但在以下符合以下条件的人群更容易得:
年龄:在5到15岁之间
季节:冬天或初春
环境:一大群人在室内封闭环境
兄弟姐妹,或者是同一班级的孩子中有人感染上了,其他人就可能会被传染,出现类似症状。
成年人中虽然少见,但与儿童接触的家长或其他成年人也可能会被传染。
如果怀疑自己或孩子可能患有链球菌性喉炎,建议去医院检查。医生诊断链球菌性咽喉炎的方法是进行快速抗原测试或咽喉培养。
两者都涉及在喉咙和扁桃体的背面擦拭无菌棉签以获取分泌物样本。
通常,医生会先进行快速抗原测试。通过在喉咙中查找,在几分钟内检测出链球菌。
如果测试结果呈阴性,但医生仍怀疑是链球菌,则下一步可能是咽喉培养。有些医生会根据当地规程同时进行两项检查。
从喉咙后部收集的样品在实验室中进行培养(繁殖)以发现细菌的存在。咽喉培养时间可能需要两天。
潜伏期:2-5天;
一般人经过治疗,会在10天内恢复正常。
由于链球菌性咽喉炎是一种细菌感染,因此需要使用抗生素。不过需要注意的是,使用抗生素后,虽然症状会很快缓解,但仍需坚持服用一个疗程或遵医嘱。
另外,常规非处方药也有助于缓解症状。
补充疗法:
家庭疗法不能治愈链球菌性咽喉炎,但可以对抗不适。美国疾病控制与预防中心建议,简单的如喝蜂蜜,柠檬茶或用温盐水漱口,可以缓解症状,减轻肿胀。
也可以使用加湿器来增加空气中的水分,可以缓解干燥、喉咙痛,并缓解充血。
充足的睡眠。睡眠有助于身体抵抗感染,自主修复。
不吸烟,远离二手烟。香烟烟雾会刺激喉咙痛,并增加诸如扁桃体炎等感染的可能性。
避免油漆或灰尘刺激喉咙和肺部。
链球菌咽喉炎也会引起并发症(虽然不是很常见)。
如果细菌传播到身体的其他部位,就会导致所谓的侵入性感染。
并发症包括:
扁桃体周围有脓肿
颈部肿大的淋巴结
鼻窦感染
耳部感染
链球菌感染后肾小球肾炎
未经治疗的链球菌性咽喉炎也会引起风湿热,这是一种罕见但严重的感染,会对心脏造成损害(风湿性心脏病)。
链球菌感染和风湿热之间的联系还不清楚,但似乎是可以欺骗免疫系统。人体免疫系统转而攻击自己的组织,特别是心脏、关节、皮肤和中枢神经系统的组织,进而导致持续几周到几个月的炎症或肿胀。
其他与链球菌咽喉炎相关的病包括:
猩红热(A组溶血性链球菌感染引起的急性呼吸道传染病)
当A组链球菌产生一种毒素,导致典型的红疹时,就会发生这种疾病。猩红热的最初症状是发烧和喉咙痛。症状还包括寒战、呕吐或腹痛。
猩红热通常是一种轻微的感染。接触到A组链球菌的人通常需要两到五天的时间才会生病。
发病后一两天,颈部和胸部通常会出现红色凹凸不平的“草莓状”皮疹,然后蔓延到全身。皮疹约7天后消退。
熊猫病(与链球菌感染有关的儿童自身免疫性神经精神障碍)
根据美国国家精神健康研究所研究显示,当免疫系统对链球菌感染的反应错误地攻击大脑时,就会出现熊猫病。导致类似强迫症的症状和身体抽搐,通常是戏剧性的“一夜之间,突然发生”。
孩子们也可能变得喜怒无常或易怒,焦虑发作,或表现出与父母或所爱的人分离的担忧。
链球菌性咽喉炎具有高度传染性。当感染者咳嗽或打喷嚏时,通过空气飞沫传播细菌。
另外,接触携带细菌的表面,比如门把手,然后细菌就可能转移到其他人的眼睛、鼻子或嘴巴,其他人可能会感染链球菌咽喉炎。因此病人在咳嗽或打喷嚏时尽量遮住口鼻。
目前还没有疫苗可以预防,但可以通过一些措施减少感染。
· 建议经常洗手(可以随身携带一瓶洗手液),尤其在咳嗽或打喷嚏之后,烹饪食物或进食之前。
· 在病人用完杯子、盘子等餐具后及时清洗。
· 空调通风系统应注意清洗消毒。
· 病人在治疗期间(尤其是服用抗生素还没超过24小时的时候)尽量待在家里,不去公共场所包括学校,工作单位等地方,以免传染给其他人。
相关阅读:
主要参考资料:
Sore Throat. Centers for Disease Control and Prevention. August 30, 2019
Dan Jennifer M,Havenar-Daughton Colin,Kendric Kayla et al. StreptococcusRecurrent group A tonsillitis is an immunosusceptibility disease involving antibody deficiency and aberrant T cells.[J] .Sci Transl Med, 2019, 11: undefined.
Strep Throat: Diagnosis and Treatment. Mayo Clinic. September 28, 2018.
Vekemans J, Gouvea-Reis F, Kim JH, et al. The Path to Group A Streptococcus Vaccines: World Health Organization Research and Development Technology Roadmap and Preferred Product Characteristics. Clinical Infectious Diseases. September 1, 2019
PANDAS — Questions and Answers. National Institute of Mental Health. 2019
Strep Throat or Sore Throat? Best Ways You Can Tell. Cleveland Clinic. March 6, 2020
王亚莉, 孙丽娟, 刘桂兰. 儿童链球菌性咽炎的发病年龄、季节及诊治[J]. 人民军医, 2000(11):671-672.