-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
人类口腔微生物组是一个微生物密集、化学信号持续变化的生态系统。每天刷牙、漱口,背后都有数以百亿计的微生物在牙面、舌背和牙龈沟“分工协作”。它们争夺营养、彼此发送信号,也共同搭建生物膜。不同微生物之间的竞争与协作共同塑造群落结构,并影响宿主健康。
当长期高糖饮食、清洁不足或反复炎症,改变的不仅是单一细菌的数量,更是整个微生物群落的关系网络:多样性下降,变形链球菌、牙龈卟啉单胞菌等潜在致病菌占据优势,而维持稳态的共生链球菌、Rothia 和 Actinomyces 则受到竞争减少。龋齿、牙周炎和牙龈炎等疾病已影响至少数十亿人,口腔微生物群还可能与心血管疾病和神经退行性疾病相关。
究竟是什么让口腔微生物群落从“相安无事”转向“持续失衡”?答案可能不只藏在单一菌群里,也藏在微生物制造的天然产物中。宏基因组研究显示,口腔微生物携带丰富的生物合成基因簇(BGCs),具有生产多样天然产物的巨大潜力。
这些代谢物正被逐渐视为介导微生物相互作用的关键媒介,许多口腔 BGC 与健康或疾病状态相关。它们能够调节细菌附着、生物膜、竞争、铁获取、氧化应激和宿主免疫。研究已在口腔中发现数千至上万个 BGC,且部分基因簇在健康、龋齿和牙周炎状态之间存在差异。
本文将聚焦结构复杂、合成代价较高的非核糖体肽(NRP)和多聚酮(PK),从 mutanofactin、mutanocyclin、mutanobactin、salivabactin 和 enterobactin 出发,追踪它们如何塑造口腔群落,再转向尚未揭示的 BGC 及其调控机制。我们也将进一步追问:口腔菌群检测能否从“检测到哪些菌”,走向“哪些功能正在表达、哪些化学变化正在发生”?
口腔微生物的基因中存在大量能够生产这些化学物质的“基因生产线”,所以研究这些基因簇,有助于理解口腔疾病是如何发生和持续的,也可能帮助发现新的药物或治疗线索。
口腔微生物群是一个持续通过化学互作进行适应的动态共同体,维系着口腔健康与疾病之间的微妙平衡。龋齿、牙周炎与牙龈炎等口腔疾病在全球极为常见,估计至少影响着数十亿人。
近年来,口腔微生物群组成还与心血管及神经退行性疾病等系统性疾病相关,这进一步突显了理解其生化影响的必要性。
口腔疾病通常与局部菌群失衡相关
口腔疾病通常与局部菌群失衡相关:微生物多样性降低,而变形链球菌(Streptococcus mutans)和牙龈卟啉单胞菌(Porphyromonas gingivalis)等潜在致病类群占优势。
相较之下,健康口腔往往具有更丰富且更稳定的共生链球菌群,以及罗氏菌(Rothia)和放线菌(Actinomyces)等。它们分别定植于牙齿表面、舌背与龈沟等不同生态位,并通过形成结构化生物膜而发挥保护或致病作用。高糖饮食、宿主炎症反应及遗传易感性等因素都可能打破这种平衡。
口腔天然产物是致病的关键因子
尽管已广泛研究疾病过程中菌群组成的变化,但群落如何在生化层面转向致病性优势状态的机制仍未明晰。天然产物或特定代谢物是细菌用来调控生长、行为与群落结构的关键小分子。这些分子可为阐明微生物失衡的化学驱动因素以及疾病进展中的关键环节提供路径。
按生物合成来源,天然产物通常包括:多聚酮(PK)、非核糖体肽(NRP)、核糖体合成并经翻译后修饰的肽(RiPP)、萜类、糖类、生物碱、杂合分子等,另外还有一些由基础代谢“衍生出来”的小分子。
要合成某一类天然产物,细菌通常需要一整套相关基因协同工作:这些基因常常会和调控、运输和自我保护(避免被自己产物伤害)等基因一起聚在染色体上的某个区域,形成生物合成基因簇(BGCs)。
注:之所以能用计算方法去找这些“基因包”,是因为在 BGC 中常能观察到一些典型“合成机器”——例如PKS(多聚酮合成酶)、NRPS(非核糖体肽合成酶)和萜烯合酶等线索;把这些信息和 DNA 序列一起分析,就能预测可能存在的 BGC。
★ 健康、龋齿与牙周炎状态下的BGC差异显著
研究者已经在大量口腔细菌基因组与宏基因组数据中系统挖掘到了 BGC 的化学潜力。比如,对461个口腔细菌基因组进行绘图,发现近 5000 个 BGC,并且健康、龋齿和牙周炎三种状态下的 BGC 存在明显差异。
口腔微生物群中包含着多种多样的细菌基因簇
编辑
doi: 10.1128/mBio.00321-19.
进一步在唾液和牙菌斑宏基因组中,对牙周炎患者与健康对照进行比较,识别出超过10700个 BGC。从健康与龋齿来源的宏基因组中识别约 4500 个 BGC,其中将近一半在健康与龋齿的宏转录组数据中呈现显著差异表达。
总体而言,这些结果提示:BGC 编码的“化学工具”很可能不仅参与维持口腔生态稳态,也可能在疾病发生发展过程中起到推动作用。
口腔代谢物也能通过多种方式影响宿主和菌群
至于口腔代谢物,已有研究较清楚地描述了一些“典型分子”,例如短链脂肪酸、氨基酸分解产物、挥发性硫化物和细菌素等。
它们可能通过多种方式影响宿主与菌群:例如刺激炎症、削弱组织结构;同时也能改变局部环境,让某些细菌更容易生存。部分代谢物还能像“窄谱抗菌剂”一样,只针对特定竞争者,帮助优势菌更稳地占据生态位。
相比之下,结构更复杂、合成成本更高的 NRP 和 PK 类天然产物,目前仍缺少像“常见代谢物”那样的系统整合研究。原因之一是它们通常需要更庞大的基因组装(对应更大的 BGC),代谢负担也更高,因此这些分子往往更可能承载更突出、更关键的进化与生态功能。
口腔天然产物和口腔代谢物有什么区别?
口腔产生的天然产物和口腔代谢物都可以是细菌分泌/产生的“小分子”,但在研究上侧重点不同:
1)侧重点不同
口腔代谢物:更偏“代谢产物/末端分子”的概念,通常指在口腔环境中实际被检测到的代谢小分子(例如通过代谢组学识别到的酸类、挥发性硫化物、氨基酸分解产物等)。
口腔天然产物:更偏“生物合成来源”的概念,通常指由微生物(或共生体)通过专门的生物合成通路(常见为 BGC)产出的次级代谢类小分子,常结构更复杂、更具“化学武器/信号分子”属性。
2)生成机制通常不同
天然产物往往对应明确的合成体系:例如 PK、NRP、RiPP、萜类等,背后常有成簇的基因(BGC)与关键酶(如 PKS、NRPS、萜烯合酶)。
代谢物更多反映“基础代谢+环境适应”的结果:糖酵解、氨基酸代谢、脂代谢以及厌氧发酵等都会产生大量代谢终产物,不一定需要典型 BGC。
简单比喻:代谢物更像“日常加工后的产物清单”;天然产物更像“特定工厂按配方定制的功能性化学品”。
3)结构复杂度与功能定位
天然产物通常结构更复杂、合成代价更高,常与竞争/协作、生态位塑造、抗性或抑菌等功能相关(当然也有例外)。
代谢物结构相对更“基础”,功能可能同样重要,但更常体现为改变pH、引发炎症、影响营养环境、产生气味/刺激性等。
4)是否有重叠?
有
现实中一些天然产物也会在代谢物检测中出现;但许多代谢物可能不被归类为“天然产物”,因为它们并非来自典型 BGC 的次级代谢体系,或结构/机制不满足“天然产物”研究框架。
目前得到充分表征的口腔多聚酮(PK)、非核糖体肽(NRP)及其杂合代谢物,绝大多数来自革兰阳性兼性厌氧菌——变形链球菌(Streptococcus mutans)。它虽以形成致龋生物膜著称,却也是 NRP、PK 与 RiPP 等生物活性天然产物的丰富来源。
非核糖体肽类物质以及多聚酮化合物
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下表概览本节的六类代表性分子;随后将沿“分子如何改变群落”的顺序展开。
编辑
Mutanofactin —促进口腔早期定植的天然产物
2021 年,研究人员发现mutanofactins——一类由少数变形链球菌临床分离株产生、能促进生物膜形成的脂肽。
该家族包含五种两亲性脂肽,由 N-酰基脂肪酸部分连接短肽骨架。主要代谢物 Muf-697 的末端 PK 部分含噻唑取代基;Muf-458、-539、-541 与 -607 则具有不同末端基团。机制研究表明,Muf-697 可非特异性结合于变形链球菌细胞表面,提高表面疏水性,并通过物理化学作用促进附着和后续生物膜形成。
其生物合成呈典型装配线模式:先以十碳-2,4,6,8-四烯酰链起始修饰 L-苯丙氨酸,再经两个 NRPS 模块与两个 PKS 模块延伸;新生链最终在缩合域介导的罕见末端酯化中引入 L-乳酸并释放,形成 Muf-697。装配线不同步骤的水解会产生多种旁路产物。
mutanofactin的生物合成及促进生物膜形成的能力
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanofactins能促进链球菌等形成生物膜并定植与口腔
在完成 mutanofactins 全合成并开展微生物学分析后发现,Muf-697 能促进变形链球菌及戈登链球菌、口腔链球菌等早期定植者形成生物膜,对具核梭杆菌与不动杆菌的影响则很小,提示它对早期群落构建具有选择性。
尤为关键的是,该分子能够使黏蛋白包被表面发生膨胀,从而帮助变形链球菌附着于原本难以定植的黏蛋白层。muf BGC 在早期指数生长期表达达到峰值,恰好对应初始附着的关键窗口,也支持其在多微生物生物膜建立中的作用。
Mutanocyclin与Reutericyclin —抗菌前体到功能再利用的天然产物
含四元酸(tetramic acid)的天然产物以 2,4-吡咯烷二酮核心为特征,在多种生态位中可表现抗菌、抗真菌和细胞毒性。
★ Reutericyclins具有抗菌性,还能减轻体重增长
Reutericyclins 就是一种此类化合物,最初发现于肠道微生物罗伊氏乳杆菌,由混合型 NRPS–PKS 基因簇编码,包含 A–C 三种 N 连接脂肪酰侧链长度不同的同系物。它们是强效质子离子载体,可在纳摩尔浓度破坏广谱革兰阳性菌的跨膜 pH 梯度;在小鼠中还被报道可减轻利培酮相关体重增加并引起与瘦型相关的微生物组变化。
mutanocyclin的生物合成及其生物活性
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanocyclin影响免疫反应、降低变形链球菌丰度
同源 muc 基因簇在一些(约14%)已测序的变形链球菌里能找到。研究显示,带有 muc 的菌株通常不主要产出 reutericyclin,而是生成缺少脂酰侧链的 mutanocyclin。
这条脂酰侧链很关键:当它缺失时,mutanocyclin 的抑菌/杀菌能力会明显减弱——它往往只对少数口腔细菌表现出较弱作用;而 reutericyclin 则更“强势”,能在实验性的合成生物膜里显著降低接近 40 个口腔细菌类群的丰度,从而明显改变群落结构。少数仍携带 muc 的菌株也能产生 reutericyclin,但其产生量通常比 mutanocyclin 低约一个数量级。
mutanocyclin 可能被“再利用”于不同生态功能:它不仅可能影响免疫反应或屏障环境(如在 Matrigel 栓实验中降低白细胞浸润),还可能通过影响信号通路(例如调节 PKA 亚基 Tpk2 及下游 SFL1)来抑制白色念珠菌的菌丝形成。但它对生态的作用并非单向:近期多物种生物膜研究表明,mutanocyclin 可能会降低变形链球菌丰度,同时也能增强戈登链球菌、血链球菌等对变形链球菌的拮抗效应。也就是说,它更像是在塑造“群落博弈”的规则,而不是单纯地只杀一种细菌。
在机制上,reutericyclin 和 mutanocyclin都来自同一条“混合装配线”:NRPS–PKS共同参与合成,先形成带有吡咯烷-2,4-二酮核心的骨架。接着,reutericyclin的前体会先被氨基酸酰化加上特定修饰;然后由 mucF 编码的脱酰化酶把脂酰基等部分“去掉”,生成 mutanocyclin。
Mutanobactin —结构多样、功能多面的天然产物
在已表征的变形链球菌特殊代谢物中,mutanobactin 是功能谱最广的一类。对应 mub BGC 在超过 30% 的变形链球菌基因组中存在,显示出潜在的进化优势。此前研究已关注其结构、对白色念珠菌菌丝形成的抑制,以及与氧化应激耐受相关的性质。
注:迄今已发现逾 50 种同系物。Mub-A 至 Mub-D 最丰富且结构已解析。Mub-A 至 Mub-C 含有罕见的 1,4-噻氮杂环庚烷环;Mub-D 不具该结构,而有 7-甲基取代。其大环结构源于具有一定“宽容性”的 NRPS–PKS 装配线:末端还原域释放高反应性线性醛中间体,后者自发进行非酶促大环化,产生所观察到的化学多样性。
★ Mutanobactin高浓度下能抑制戈登链球菌、不动杆菌等
Mutanobactin的作用不仅限于抗氧化耐受。Mub-A、Mub-B 和 Mub-D 可抑制白色念珠菌的菌丝形成,并下调与毒力相关的 ECE1 和 SAP2;其中半数最大抑制浓度约为 5.3 μM。去除脂质侧链的截短类似物活性显著降低,说明脂质结构域至关重要。
较高浓度(通常 >50 μM)下,它们还可对戈登链球菌、不动杆菌及口腔放线菌产生抗菌作用。
★ Mutanobactin 也可能调节宿主反应
Mub-B 被报道可改变多种促炎细胞因子的水平;Mub-D 在约 5 μM 时可促进人牙髓干细胞与人骨髓干细胞的增殖和分化。
综合来看,这类分子可能同时参与变形链球菌毒力与宿主互作。但其在天然多物种口腔群落以及真实生理浓度下的具体作用仍需进一步研究。
Mutanoclumpin —协同驱动生物膜与龋齿的天然产物
最新表征的变形链球菌 NRP–PK 杂合 BGC 编码 mutanoclumpins。该途径产生两种结构不同的代谢物 MC-584 与 MC-586;二者在可能由末端还原酶域催化的最终大环化步骤分叉。
★ mutanoclumpins可能是变形链球菌致龋关键
人牙菌斑的宏基因组与宏转录组分析显示,mutanoclumpin BGC(mcg)与龋齿相关;更值得注意的是,mcg 表达与龋齿相关样本的关联强于变形链球菌自身的 16S 丰度。这一发现强调,功能活性有时比物种是否存在更能反映疾病状态。
MC-584 与 MC-586 需要共同存在,才能恢复 mcg 敲除突变体的生物膜形成,显示出双代谢物协同机制。两种化合物分别与变形链球菌细胞表面结合,并诱导不同的多细胞形态,共同构成生物膜结构。
该研究进一步提示:理解口腔致病性,不能只追踪单一菌或单一代谢物,也应解析由 NRPS/PKS 产生的生物膜代谢物之间的协调作用。
Salivabactin:—源自口腔益生菌产生的天然产物
Salivabactin 由人源口腔益生菌唾液链球菌 K12(Streptococcus salivarius K12)产生,与其知名的抗菌 RiPP 类 salivaricins 一同构成抗菌武器库;相关 BGC 均位于 pSsK12 巨型质粒上。
★ Salivabactin对多种革兰阳性病原菌具有活性
该分子在体内外对多种革兰阳性病原体表现强效活性,尤其针对化脓性链球菌(A 组链球菌,GAS)。体外对 GAS 的 MIC 约为 2 μg/mL,杀菌效力可与青霉素 G相当;它还抑制肺炎链球菌、变形链球菌和金黄色葡萄球菌。
唾液分泌素的生物合成、调控机制
编辑
doi: 10.1146/annurev-biochem-051024-050248.
在 GAS 坏死性肌炎小鼠肌内感染模型中,纯化 salivabactin 的保护效应与同剂量青霉素 G对照相当。尽管其体外对革兰阴性菌无活性,在大肠杆菌异源生产时却显示明显细胞毒性,提示跨膜转运可能限制了其对革兰阴性菌的抗生素活性。
注:salivabactin 由 sar 基因簇编码的 trans-酰基转移酶型 PKS–NRPS 杂合装配线合成,核心酶包括 SarD、SarE、SarF、SarG、SarH 和 SarJ。异源表达及纯化酶体外重构证明,这六种酶构成合成所需的最小机器。其末端硫酯酶域属于新亚家族,可连续催化水解、脱羧和 β-羟基消除,生成决定其独特结构的末端二烯部分。复杂的合成机制体现了唾液链球菌 K12 作为多功能抗生素生产者的潜力。
Enterobactin —一种可作为高效铁载体的天然产物
黏液罗氏菌(Rothia mucilaginosa)是常见口腔成员,近年被证实为首个产生儿茶酚型铁载体 enterobactin 的口腔共生菌;此前,人们认为该分子主要局限于致病性肠道细菌。Enterobactin是自然界已知铁亲和力最高的分子之一。这种超高亲和力使细菌即使在宿主以封存铁为防御策略时也能获取铁,因此与微生物竞争和宿主营养免疫调节密切相关。
★ 罗氏菌产生的enterobactin特异性影响不同链球菌
基因组学、代谢组学和核磁共振分析共同证实:黏液罗氏菌 ATCC25296 可在营养受限条件下通过 NRPS 途径合成 enterobactin。尽管其 BGC 与大肠杆菌同源性很低,仅 NRPS 基因与大肠杆菌 EntE–EntB 融合蛋白有约 41% 相似性,但 NMR 显示口腔来源产物保留典型结构——由2,3-二羟基苯甲酰-L-丝氨酸构成的环状三聚酯。
类似 BGC 还存在于龋齿罗氏菌(Rothia dentocariosa)与空气罗氏菌(Rothia aeria),提示该途径在口腔罗氏菌属中较广泛。初步研究显示,黏液罗氏菌来源 enterobactin 可间接对抗致龋变形链球菌与致病金黄色葡萄球菌,同时又对共生菌产生高度物种特异性作用:唾液链球菌与戈登链球菌受益,口腔链球菌生长降低,而血链球菌不受影响。
小编的话
本节围绕变形链球菌及口腔共生菌的 NRPS–PKS 杂合代谢物展开:mutanofactins 用于“早期粘附与生物膜形成”,mutanocyclin/reutericyclin 则在“抗菌与免疫调节”之间切换,而 mutanobactin、mutanoclumpin 进一步指向更复杂的功能协同。
值得注意的是,许多现象并不完全由单一菌种决定,反而更受关键代谢物的表达水平牵引:当 BGC 活性与龋齿相关性强于 16S 丰度时,疾病更像是被代谢网络驱动而非单纯被物种“占领”。小编认为,未来口腔致病机制研究不应只追踪“谁来了”,还要追问“它在什么营养与生态压力下,用了哪些物质”。这样才能真正理解天然产物如何把共生转化为致病。
目前我们已经弄清并能“点名”的口腔 NRP/PK 天然产物其实只是很小的一部分。原因在于:口腔里很多微生物的基因组体量不大,通常只有约2–3 Mbp;而一些天然产物“生产能手”(如链霉菌、伯克霍尔德菌)常见基因组能达到约 7 Mbp。基因组更小,往往意味着潜在的 BGC(生物合成基因簇) 可能也相对更少。
不过,即便在这种“基因空间更紧”的情况下,NRP/PK 的基因簇仍然占了不小的比重,这说明它们很可能并不是多余的装饰品,而是对生存与适应很重要、也很有进化价值。
基于下面对变形链球菌、罗氏菌属、具核梭杆菌这三类口腔关键菌群的梳理,我们可以得到一个更清晰的认识:口腔天然产物并不只是由少数“已经被命名的致龋分子”构成,而更像是一套由许多仍在等待解析的 NRPS/PKS 基因簇 共同组成的化学工具箱;这些产物会在不同的生态位、不同的时间节点被“启动”,从而一起塑造口腔群落的状态。
变形链球菌:未表征的调控潜能
除前述已知代谢物外,变形链球菌还携带多个未表征的 NRPS/PKS BGC。代表性例子包括 mutantioxidin BGC(mao)和 BGC2。
★ mao有助于变性链球菌的氧化应激耐受
2010 年对 UA140 和 MT4653 菌株的研究发现,mao 编码一种与氧化应激耐受相关的黄色色素。
mao 约存在于20% 的变形链球菌分离株,并在植物相关乳酸乳球菌及鼻腔定植表皮葡萄球菌中发现同源 BGC。破坏 mao 的变形链球菌突变株暴露于 O2 或 H2O2 时滞后期延长、倍增变慢,提示 mutantioxidin 与氧化应激耐受有关;乳酸乳球菌 KF147 同源 BGC 中 4′-磷酸泛酰巯基乙胺转移酶基因缺失也会显著降低细胞在氧化压力下的存活能力。
★ BGC2可能参与生物膜形成后的功能调控
BGC2 也是一套“基因配方”,由18个基因协作组成,属于 NRPS–PKS 这种混合型合成系统,且常常和 mutanofactin 的 BGC1 同时存在。两者的启动时间不一样:BGC1 更偏向于在细菌刚开始“贴上去”形成附着时就表达;而 BGC2 往往在生物膜逐步建立、进入后期时表达明显增强。
不过,研究者通过敲除 BGC2 发现,生物膜的总体结构和稳定性并没有明显改变。这提示 BGC2 可能并不只是“搭建生物膜本身”的关键零件,而更可能参与生物膜形成后的某些调控或功能细节。
代表性未表征的非核糖体肽类及聚酮类化合物BGCs
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下一步就是弄清 BGC2 主要产物是什么,从而更好理解它究竟在发挥什么作用,以及为什么在同一菌株里 BGC1 与 BGC2 会一起共存?
Rothia:与健康相关、蕴藏着丰富的天然产物潜能
罗氏菌属(Rothia)是人类口腔与呼吸道常见的非运动性、不产孢、革兰阳性球杆菌,以兼性厌氧方式生长。口腔中较常见的三种为空气罗氏菌(R.aeria)、龋齿罗氏菌(R.dentocariosa)和黏液罗氏菌(R.mucilaginosa):前两者多见于牙菌斑,黏液罗氏菌则是舌背微生物群的重要成员,可形成广泛斑块。
尽管 Rothia 可在临床感染中作为机会性病原体出现,但它通常是健康口腔的关键组成,丰度往往与牙周病负相关;黏液罗氏菌和空气罗氏菌常见于低龋人群,而龋齿罗氏菌则检出于高龋人群。空气罗氏菌还被提出可作为还原硝酸盐的益生菌,与硝酸盐益生元组合用于牙周炎干预。
★ Rothia 潜在天然产物助力口腔稳态
基因组挖掘揭示其天然产物能力远比预期丰富。对 155 个 Rothia 基因组的比较研究发现,80% 至少携带一个 BGC,并将 NRP BGC 分为四个家族。其中一个主要家族是缬氨霉素抗生素 BGC;另一类为见于人源黏液、龋齿和空气罗氏菌的 enterobactin BGC。
研究还发现一种在 Rothia nasisuis与Rothia nasimurium 中常见的新型 enterobactin-like NRP BGC:它虽与 enterobactin BGC 共享保守基因,却编码不同 NRPS 核心,因而被推测产生结构不同的金属结合代谢物以促进定植。
此外,一株来自人类口咽的龋齿罗氏菌对致病奈瑟菌具有明确抗菌活性,其基因组包含六个 BGC,包括 enterobactin BGC 与一个 II 型 PKS BGC。这些线索表明,NRPS/PKS 可能是 Rothia 适应口腔微环境的重要组成;其编码代谢物的结构解析,有望阐明微生物—微生物与微生物—宿主互作的分子基础。
具核梭杆菌:生物膜“桥梁菌”的新兴合成潜力
具核梭杆菌(Fusobacterium nucleatum)既是人类口腔常见成员,也与牙周疾病相关,是一种革兰阴性、长杆状厌氧菌。它在口腔生物膜中扮演“桥梁菌”:连接早期和晚期定植者,促进生物膜成熟与稳定。
★ 健康相关梭杆菌亚种的NRPS产物潜能
它可与链球菌、放线菌等早期定植者,与韦荣菌、放线杆菌、拟杆菌、二氧化碳嗜纤维菌(Capnocytophaga)、卟啉单胞菌等晚期定植者,以及白色念珠菌共聚集。不同亚种与健康/疾病的关联也不相同:虽然F.nuclearum的亚种集中在牙周病的部位,但F.polymorphum和F.vincentii的亚种通常存在于健康的口腔中。
其遗传与代谢多样性仍刚开始被解析。泛基因组研究显示,天然产物 BGC,尤其 NRPS 编码簇,存在亚种特异性分布:NRPS 簇 1 在各亚种中高度保守,而另一个 NRPS 簇 2 则同时存在于多形亚种与文森特亚种。鉴于这两种亚种在健康口腔中的常见性,解析其 NRPS 产物及功能,可能为理解其潜在健康贡献带来帮助。
小编提醒
现有研究表明,口腔微生物虽因基因组较小而携带的 BGC 数量有限,但 NRPS/PKS 基因簇仍在多个关键菌群中稳定存在,说明其产物可能具有重要的生态价值。
变形链球菌的 mao 与 BGC2 分别可能参与氧化应激耐受和生物膜后期调控;罗氏菌的相关基因簇可能通过金属获取、抑制竞争菌等方式促进定植并维持口腔稳态;具核梭杆菌中呈亚种特异性分布的 NRPS 簇,则可能与健康或疾病相关生态位的分化有关。
由此推测,口腔天然产物的作用并非局限于“抗菌”,而可能涉及应激防御、营养竞争、群落交流及宿主互作。未来应结合代谢组学、空间转录组学和基因敲除实验,明确这些基因簇在特定时间与微环境中的产物及功能,从而将“基因组潜力”真正转化为对口腔生态机制的理解。
与口腔菌群检测的潜在衔接:从“群落图谱”走向“功能假设”
这篇文章最重要的一点在于,把关注点从“哪些菌变多或变少”推进到“哪些功能正在被表达、哪些化学分子正在改变生态位”。因此,若将谷禾口腔菌群检测作为观察口腔微生态的入口,其结果可在不越过检测能力边界的前提下,被组织为以下逐层递进的解释框架。
编辑
具体而言,若检测结果提示变形链球菌相关生态位发生改变,可在研究层面提出与 mutanofactin、mutanocyclin、mutanobactin 或 mutanoclumpin 相关的生物膜形成、应激适应和跨物种互作假设;若罗氏菌相关类群处于值得关注的变化状态,则可进一步追问其铁获取与共生竞争的功能背景;而具核梭杆菌的亚种与功能簇分布,则可为“桥梁菌”如何参与群落成熟提供探索线索。这里的关键词是“提出假设”,而不是从物种丰度直接推断某一种代谢物的存在或疾病结论。
对检测解读而言,最有价值的实践并非把某一菌简单标记为“好”或“坏”,而是把样本置回生态网络:采样部位、龋齿/牙周状态、饮食与口腔环境、群落多样性、潜在功能、以及必要时的复测趋势,都应共同进入判断。与本文强调的多组学方向相一致,口腔菌群检测可作为一个初始“群落地图”;当研究或健康管理问题需要更强的功能证据时,再由宏基因组、宏转录组、靶向代谢组或空间成像逐层验证。
本文所呈现的并不是一张简单的“有益菌—有害菌”名单,而是一幅由分子互作编织而成的口腔生态图景。变形链球菌产生的 mutanofactin、mutanocyclin、mutanobactin 和 mutanoclumpins,可参与附着、生物膜构建、抗氧化与跨物种竞争;口腔益生菌唾液链球菌 K12产生的 salivabactin,展示了抗菌分子与 pH 环境、群体感应之间的精细配合;Rothia 产生的 enterobactin,则说明共生菌也能通过铁获取和物种特异性互作影响群落。NRP/PK 代谢物因此连接起生物膜、营养、竞争、宿主免疫与疾病表型,并可能借助 BGC 的水平转移和代谢“串话”跨越物种边界。
这也改变了我们理解口腔菌群检测的方式。一次检测看到的菌群丰度,更像是一张“群落地图”,它告诉我们哪些菌群可能在,却未必能说明谁正在表达功能、谁正在释放代谢物。对谷禾口腔菌群检测结果的解读,也应沿着这一思路推进:在物种组成之外,结合样本部位、临床表型与复测趋势;在检测能力允许时,再进一步关注 BGC、代谢组等功能证据。
当口腔健康被看作一个动态生态过程,成为连接群落结构、化学功能和时间变化的观察窗口。谷禾健康关注的,不只是“有哪些菌”,更是这些菌共同构成了怎样的微生态,以及它们可能参与哪些重要功能。依托长期积累的中国人群口腔与肠道菌群数据库,16S检测基础上,结合菌群结构和潜在功能代谢进行综合解读,帮助用户避免只盯着单个“有益菌”或“有害菌”,而是从整体生态和动态变化的角度理解检测结果。
从口腔到肠道,菌群检测的意义正在从“看丰度”走向“看生态、看功能、看趋势”。未来,随着代谢组学、BGC分析、转录组和蛋白等技术的发展,我们将能够更深入地回答“谁在场、谁在发挥作用、产生了什么、如何影响健康”等问题。现阶段,谷禾希望通过更丰富的人群数据库、更规范的检测技术和更清晰的报告解读,为用户建立一扇认识自身微生态的窗口,让检测结果真正服务于长期、科学、个体化的健康管理。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Loop Yao M, Dai Y, Zhang W. Natural Products from the Oral Microbiome. Annu Rev Biochem. 2026 Jun;95(1):569-593.
Ma Z , Zuo T , Frey N , Rangrez AY. 2024 . A systematic framework for understanding the microbiome in human health and disease: from basic principles to clinical translation . Signal Transduct. Target. Ther. 9 ( 1 ): 237 10.1038/s41392-024-01946-6
Huttenhower C , Gevers D , Knight R , Abubucker S , Badger JH , et al. 2012 . Structure, function and diversity of the healthy human microbiome . Nature 486 ( 7402 ): 207 – 14 10.1038/nature11234
Gancz AS , Weyrich LS. 2023 . Studying ancient human oral microbiomes could yield insights into the evolutionary history of noncommunicable diseases . F1000Research . 12 : 109 10.12688/f1000research.129036.2
Jain N , Dutt U , Radenkov I , Jain S. 2024 . WHO’s global oral health status report 2022: actions, discussion and implementation . Oral Dis . 30 ( 2 ): 73 – 79 10.1111/odi.14516
Adil NA , Omo-Erigbe C , Yadav H , Jain S. 2025 . The oral–gut microbiome–brain axis in cognition . Microorganisms 13 ( 4 ): 814 10.3390/microorganisms13040814
Peng X , Cheng L , You Y , Tang C , Ren B , et al. 2022 . Oral microbiota in human systematic diseases . Int. J. Oral Sci. 14 ( 1 ): 14 10.1038/s41368-022-00163-7
Hajishengallis G , Lamont RJ , Koo H. 2023 . Oral polymicrobial communities: assembly, function, and impact on diseases . Cell Host Microbe 31 ( 4 ): 528 – 38 10.1016/j.chom.2023.02.009
谷禾健康
早晨刷牙时,你会不会偶尔看见泡沫里带着一点血丝?和人近距离说话前,会不会担心自己有口臭?体检报告里的葡萄糖、胆固醇总能引起重视,可牙龈反复出血、晨起口苦、口气不清新,却常常被一句“最近上火了”轻轻带过。
长期以来,我们对口腔健康的判断方式相当”粗放”:牙不疼就是没病,牙龈偶尔出血是”上火”,口臭是”肠胃不好”。等到牙疼得睡不着、牙齿松动才去看医生,往往已经到了牙周炎晚期、牙槽骨吸收不可逆的阶段。
问题在于,在症状出现前,口腔微生态可能已发生显著变化。口腔并非无菌空间,而是人体仅次于肠道的第二大微生物群落。健康成年人口腔中大约有700余种细菌,以及真菌、病毒和古菌等,总量可达数百亿。它们分布于唾液、舌苔、牙菌斑、龈沟和黏膜等不同生态位,通过竞争、共生与拮抗形成复杂的微生态系统:部分维持口腔稳定,部分则与龋齿、牙周炎和口臭等相关。
菌群失衡往往早于症状出现——龋齿在真正形成龋洞前,可能已经历了持续的酸性侵蚀;牙周炎从刷牙出血到牙齿松动,中间可能有很长一段没有明显痛感的时间;口臭也并不总是“吃了重口味食物”那么简单。它们背后常常藏着同一个被忽略的变化:口腔里的微生物群落,正在失去原本的平衡。
更值得重视的是,口腔并不是与身体其他部位隔绝的空间。它既是食物进入消化道的第一站,也是呼吸道的门户。口腔局部长期存在的细菌和炎症,可能经由吞咽、微量吸入或短暂入血等途径,与代谢、心血管和免疫相关问题发生联系。它提醒我们:管理口腔,不能只在牙疼时才开始,也不能只把目光放在一颗牙上。
口腔菌群检测尝试把肉眼看不见的微生态变化转化为可阅读的信息:哪些菌偏多?哪些有益菌不足?可能关联哪些口腔风险?又有哪些日常因素值得优先调整?对反复龋齿、牙龈出血、顽固口臭、牙周问题反复的人来说,它有助于从“反复处理症状”走向“寻找失衡原因”;对希望提前管理健康的人来说,它也提供了一张可供追踪的口腔微生态基线。
接下来,本文将从口腔菌群讲起,解释口腔菌群检测究竟能看见什么、检测有哪些意义与价值、哪些人更值得检测,以及怎样把检测结果转化为贴近日常生活、能够长期坚持的科学干预方案。
很多人想到口腔健康,首先想到的是“有没有蛀牙”?“牙齿白不白”?“口气重不重”?但从现代口腔医学和微生态学的角度看,口腔并不是一个只有牙齿和牙龈的空间,而是一个高度复杂、不断变化的“小型生态系统”。
作为人体与外界接触最频繁的入口之一,口腔拥有仅次于肠道的丰富微生物群落。我们每天吃饭、喝水、说话、睡眠、刷牙和吞咽,都会持续影响这一生态环境。
研究显示,成年人口腔内约有500亿至1000亿个细菌,目前已发现的口腔微生物超过700种,常见优势菌约200种;此外还包括真菌、病毒和古菌等。它们从出生后逐步定植,长期分布于牙面、牙缝、牙龈沟、舌背、口腔黏膜和唾液中。
成人口腔内不同生态位及其优势细菌类群
DOI: 10.1007/978-3-031-79146-8_2
健康口腔并非无菌最好,而是生态平衡
很多人从小接受的口腔卫生观念是“把细菌刷掉”,认为口腔中的细菌越少越好。事实上,这并不准确。健康口腔本来就需要一群相对稳定的常驻微生物。在谷禾检测报告中,这些细菌通常分为两大阵营:
☛第一阵营:口腔共生菌/潜在有益菌: 它们是口腔的”维和部队”。比如血链球菌(Streptococcus sanguinis)能产生过氧化氢,抑制致龋的变异链球菌;罗伊氏乳杆菌(Lactobacillus reuteri)能分泌罗伊氏菌素,抑制牙龈卟啉单胞菌;黏液罗斯氏菌(Rothia mucilaginosa)定植在舌背和软腭,很少致病;奈瑟菌属能把膳食中的硝酸盐还原为亚硝酸盐,后者在体内转化为一氧化氮(NO),帮助血管舒张、调节血压。这些菌越多、越占优势,口腔越健康。
☛第二阵营:口腔病原菌: 它们是”捣乱分子”,一旦失控就会引发疾病。致龋菌如变异链球菌(Streptococcus mutans)能把糖发酵成乳酸,把牙菌斑 pH 降到 5.5 以下,溶解牙釉质;牙周致病菌如牙龈卟啉单胞菌,能分泌叫 gingipains 的蛋白酶,降解补体、劫持免疫信号,让菌群逃脱宿主防御,并驱动牙槽骨吸收;产硫菌如Solobacterium moorei,分解含硫氨基酸产生硫化氢,是口臭的元凶。
健康口腔中,有益菌与致病菌保持动态平衡:前者占优势,后者维持在较低水平。一旦平衡被打破——比如高糖饮食、口腔清洁不到位、吸烟、压力、抗生素滥用——致病菌就会趁虚而入,有益菌萎缩,多样性下降,菌群进入“失调”状态。失调不是某一种菌多了那么简单,而是整个生态结构发生了质变。
龋齿、口臭和牙周炎,本质上都和菌群失调有关
生活中常见的蛀牙、牙龈出血、口臭和牙齿松动等,并不只是“没刷干净牙”这么简单。这些问题往往提示口腔微生态平衡已受到影响,与菌群失衡及其引发的局部炎症密切相关。
(1)龋齿(蛀牙): 当你频繁摄入糖分,变异链球菌等产酸菌获得充足”燃料”,持续产酸,牙菌斑 pH 长期低于 5.5,牙釉质脱矿速度超过再矿化,龋洞就形成了。
值得注意的是,致龋过程里”产酸”和”耐酸”是两回事——变异链球菌既产酸又耐酸,而韦荣氏菌虽不直接产酸,却消耗乳酸、维持低 pH 环境,为更耐酸的致病菌铺路。这就是为什么报告里韦荣氏菌偏高也会被标记为龋齿风险信号。
(2)牙周炎: 这是成年人失牙的首要原因。当龈下菌斑菌群失衡,牙龈卟啉单胞菌、福赛坦纳菌、齿垢密螺旋体(合称”红色复合体”)大量增殖,它们形成高度组织化的生物膜,持续激活 IL-1β、TNF-α、IL-6 等促炎因子,通过 RANKL/RANK 通路驱动破骨细胞活化,导致不可逆的牙槽骨吸收。牙龈出血、牙周袋加深、牙齿松动,都是这场”骨吸收战争”的不同阶段。
编辑
(3)口臭: 约 80–90%的口臭源自口腔本身。舌背和牙周袋里的厌氧菌分解含硫氨基酸(半胱氨酸、甲硫氨酸),产生硫化氢、甲硫醇、二甲基硫等挥发性硫化物(VSC),就是那股臭鸡蛋味。
编辑
Solobacterium moorei、Atopobium parvulum、产黑色素普雷沃氏菌是主要”产臭工厂”。所以持续性口臭不一定是”肠胃不好”,而可能是舌背和牙周袋菌群失调的信号。
(4)黏膜与根管感染:粪肠球菌(Enterococcus faecalis)以极强耐药性著称,是根管治疗失败、持续性根尖周炎的主要元凶;衣氏放线菌可引起面颈部慢性化脓和瘘管。这些菌的存在,提示口腔某些”死角”已经形成慢性感染灶。
口腔不是孤岛:口腔菌群影响全身?
如果说上面四类还停留在“口腔内部”,那么近二十年最令人震惊的发现是:口腔菌群失衡,会通过多条通路波及全身。
连接口腔菌群失调与全身疾病的主要机制通路
编辑
doi: 10.1080/20002297.2026.2635233.
• 口腔-血液通路:牙龈沟和牙周组织血管丰富。咀嚼、刷牙、使用牙线等日常活动可造成微小损伤,使口腔细菌短暂进入血液;在牙周炎时,牙周袋上皮溃疡形成持续“入口”,更多细菌及其毒力因子可进入循环。
注:在动脉粥样硬化斑块中,已检测到牙龈卟啉单胞菌、变异链球菌、具核梭杆菌等 23 种口腔细菌的 DNA 甚至活菌。它们直接定植血管壁,激活内皮炎症,促进泡沫细胞形成。
编辑
• 系统性炎症通路:口腔菌群失调可诱发持续牙周炎症。局部产生的TNF-α、IL-1β、IL-6等促炎因子可进入血液,并刺激肝脏产生C反应蛋白等炎症指标,推动全身低度慢性炎症,进而影响血管内皮、糖代谢和免疫稳态。
• 免疫失调与分子模拟通路:某些牙周相关菌可改变宿主蛋白,产生免疫系统可能误识别的“新抗原”。例如,蛋白瓜氨酸化可能诱导抗瓜氨酸化蛋白抗体形成,在遗传易感者中与自身免疫反应有关。口腔炎症还可能对免疫细胞进行持续“预激”,使其在其他组织中产生过强的炎症反应。
• 微生物代谢物通路:口腔菌代谢产生的小分子及其前体可被吸收进入血液,影响远端器官的代谢和血管功能。例如,口腔菌可将膳食硝酸盐还原为亚硝酸盐,后者进入血液后参与一氧化氮生成,有助于血管舒张;但在菌群失调背景下,某些代谢产物也可能参与代谢紊乱和炎症过程。
关键口腔病因及其系统性影响
编辑
doi: 10.1080/20002297.2026.2635233.
• 口腔-胃肠道通路:口腔是幽门螺杆菌的重要储存库,牙菌斑中可检出存活的 Hp,随吞咽下行定植胃黏膜。口腔的梭杆菌、普氏菌、韦荣氏菌也可进入胃部,在 Hp 感染导致胃酸减少的条件下定植,产生亚硝胺,加速萎缩性胃炎→肠上皮化生→胃癌的级联反应。
• 口腔-呼吸道通路:健康人每天微量误吸约 0.01–0.1 毫升口腔分泌物,正常情况下被肺部清除。但当口腔菌群失调、吞咽功能下降(老年人、脑卒中后),口腔里的肺炎链球菌、金黄色葡萄球菌、铜绿假单胞菌及厌氧菌就会定植下呼吸道,引发吸入性肺炎。研究显示,口腔卫生干预可使 ICU 机械通气患者呼吸机相关性肺炎发生率降低约 40%。
• 口腔-脑通路:牙龈卟啉单胞菌可经三叉神经轴突顺行传输或突破血脑屏障进入脑组织,在阿尔茨海默病患者脑中检出其 DNA 及毒力蛋白酶 gingipains;变异链球菌的特定亚型(含胶原结合蛋白)可定植脑血管,诱发微出血,与脑出血独立相关。
所以,关注口腔菌群,是为了更早发现失衡的方向,更有针对性地保护牙齿、牙龈和全身健康。
传统口腔检查的”盲区”
大多数人理解的”口腔检查”,可能是每年洗牙时医生拿探针敲一敲、看一看:有没有龋洞、牙龈红不红、牙结石多不多。这套方法沿用百年,确实有效,但它有一个根本局限——它只能看到”结果”,看不到”原因”。
传统检查对 “无症状期” 几乎无能为力
龋洞是菌斑产酸脱矿之后的产物,牙周袋是骨吸收之后的产物,口臭是产硫菌已经大量增殖之后的产物。当这些”结果”被肉眼或 X 光捕捉到时,菌群层面的失衡往往已经持续了数月甚至数年。传统检查回答的是”现在坏到什么程度“,而菌群检测回答的是”为什么会坏、正在往哪个方向坏“。
更深一层,传统检查对“无症状期”几乎无能为力。但一个牙齿不松、刷牙偶尔出血的人,大概率不会主动去做全面的口腔检查。口腔菌群检测的意义,正是把这个”沉默的窗口期”彰显出来。
到底在测什么:从”培养”到”测序”的跨越
早期的口腔微生物研究靠”培养法”——把样本涂在培养皿上,看长出什么菌。但口腔里超过 50% 的细菌是“不可培养”的,培养法只能看到冰山一角。
今天的菌群检测,普遍采用高通量测序技术,针对细菌核糖体小亚基 RNA 基因的可变区(如 V3–V4 区)进行扩增测序,能鉴定到“属”或”种”级别,回答“有哪些菌、各占多少”。
口腔菌群检测能回答的四个核心问题
一份合格的口腔菌群检测报告,至少能回答四个问题,这四个问题恰好对应了健康管理的四个环节:
①—我现在的口腔菌群处于什么状态?
报告会给出一个整体结论——是”稳态良好””稳态一般”还是”紊乱”。这个总判断,比单看某一项指标更重要,因为它反映的是生态结构。
②—哪些菌超标了、哪些菌偏少了?
报告会逐一列出超标致病菌及其倍数,以及偏少的有益菌。这是”敌情通报”——知道敌人是谁、在哪、有多强,才能精准打击。
③—这些失衡意味着什么疾病风险?
报告会基于菌群-疾病的循证关联,给出多个维度的风险评分,并标注证据等级(A/B/C)。这一步是把”菌”翻译成”病”——让非专业人士也能看懂”这堆细菌名字”背后的健康含义。每一个分数背后,都对应着具体的菌群-疾病机制和文献证据。
④—我该怎么办?
报告会给出针对性的干预建议,从口腔护理、饮食调理到全身健康管理。这是检测的落脚点——检测不是目的,干预才是。
证据等级:理性看待风险评分
这是最容易被忽视、却最该被重视的一点。报告里每一项风险评分都标注了证据等级,依据的是牛津循证医学中心(OCEBM 2011)分级标准:
• A 级:有系统评价或多项随机对照试验(RCT)支持,证据最充分。比如牙周炎与龋齿的菌群关联,大量 RCT 和 Meta 分析已证实,属于 A 级。
• B 级:有队列研究或病例对照研究支持,证据较强但尚需更多验证。比如牙周炎与动脉粥样硬化的关联,多数为 B 级。
• C 级:仅有机制研究、动物实验或小样本观察,处于探索阶段。比如某些菌群-神经认知的关联,目前多为 C 级。
编辑
理解这个分级,才能避免两种极端:一是把所有高分都当”判决书”,陷入焦虑——比如评分 99 分,看起来吓人,但如果证据等级是 C 级,它更多是一个”值得关注的探索性信号“,而非”你一定会得抑郁症”;二是把所有低分都当”没事”,忽视早期预警。正确的态度是:A 级高分优先处理,B 级高分值得关注,C 级高分作为生活方式调整的参考。
检测的定位:风险评估,而非疾病诊断
必须反复强调:口腔菌群检测是”风险评估与健康管理”工具,不是”疾病诊断”工具。它不能替代牙科临床检查(探针、X 光)、不能替代医学检验(血糖、血脂、幽门螺杆菌呼气试验)、更不能替代病理诊断。它的价值在于”前置”和”补充”——在症状出现之前提示风险方向,在临床检查之外补充菌群维度的信息。
打个比方:菌群检测像体检里的”血脂化验”,它告诉你风险偏高,但到底有没有冠心病,还得靠心电图、冠脉造影等临床检查。同样,菌群检测告诉你牙周炎风险 80 分,但到底有没有牙周袋、骨吸收多少,还得靠牙科的探诊和全口 X 光。两者结合,才是完整的健康判断。
从统一建议到“因菌施策”
传统的口腔健康建议,几乎是”千人一面”的:早晚刷牙、用含氟牙膏、少吃糖、定期洗牙等。这些建议没错,但太笼统。
✔传统建议太过笼统,根据检测报告更有针对性
同样是”口臭”,有人是舌背产硫菌过多,有人是牙周袋厌氧菌失控,有人是扁桃体结石——原因不同,干预方向完全不同。
对舌背产硫菌,重点在清洁舌苔、使用舌刮;对牙周袋厌氧菌,重点在龈下刮治、局部抗菌;对扁桃体结石,则要耳鼻喉科处理。不分原因地猛刷牙、猛漱口,可能南辕北辙。
菌群检测的价值,在于把”千人一面”变成”因菌施策”。帮助口腔医生和受检者理解:风险更可能来自哪里,下一步应该优先做什么。
帮助发现“没有疼痛,但已经存在问题”
许多口腔疾病的发展是”沉默”的。牙周炎从牙龈炎到骨吸收,可能持续数年而无明显疼痛;龋齿从脱矿到成洞,早期也无感觉;口腔-全身的慢性炎症通路,更是悄无声息。等到症状明显,往往已经错过最佳干预时机。
发现”沉默的失衡”,抢占干预窗口
菌群检测最大的价值之一,是把这个“沉默窗口期”显影。例如一份报告显示牙周炎风险 80 分(高)、18 种病原菌超标、有益菌大面积偏少。如果没有这次检测,他大概率会继续”牙不疼就不看医生”,直到某天牙齿松动或牙龈反复流脓,才发现牙槽骨已经吸收。
而此时,骨吸收是不可逆的——再好的治疗也只能”止损”,无法”复原”。检测让他提前数年看到风险,从而有机会在不可逆损伤发生之前介入。
连接口腔与全身:从”看牙”到”管全身”
传统观念里,”看牙”和”看内科”是两回事。但菌群检测把两者连了起来。除了牙周炎、龋齿、口臭这些口腔问题,还有糖尿病、肥胖、高血压、动脉粥样硬化、阿兹海默病、慢阻肺、类风湿性关节炎、甚至肿瘤相关疾病——这些疾病风险并非凭空而来,而是基于口腔菌群与这些疾病已被验证的关联机制。
编辑
doi: 10.1080/20002297.2026.2635233.
①糖尿病:目前较有共识的双向关系
糖尿病会增加牙周炎风险,而重度牙周炎也可能增加血糖控制难度。
已有研究提示,规范牙周治疗后,部分糖尿病患者在数月后糖化血红蛋白可出现一定幅度下降。这个效果不能取代降糖药、饮食控制和运动,但说明牙周治疗应被看作糖尿病综合管理的一部分。
2型糖尿病与牙周炎之间的关系
编辑
doi: 10.1080/20002297.2026.2635233.
②心血管健康:有关联,但不能以菌群报告诊断
口腔菌群与动脉粥样硬化、冠心病、脑卒中等存在较多流行病学关联。口腔病原菌DNA或相关成分在部分动脉斑块中被检出,也提示可能存在炎症和微生物相关机制。
注:菌群检测只能提供附加线索,不能替代心电图、血脂、血压监测、冠脉评估等标准检查。
心血管疾病(CVDs)中口腔-肠道轴的机制
编辑
doi: 10.3389/fcimb.2025.1658502
③肥胖、代谢健康等:关系复杂
肥胖、胰岛素抵抗、脂肪肝与口腔菌群变化、牙周炎之间存在双向影响的可能。高糖高脂饮食、慢性低度炎症、睡眠不足和口腔卫生差,可能同时推动代谢问题和口腔失衡。
慢性牙周炎与肥胖之间的双向联系机制
编辑
doi: 10.1016/j.jds.2025.07.009
④胃肠道疾病:关联密切
口腔菌群与胃炎、反流性食管炎、溃疡性结肠炎、克罗恩病存在双向关联。口源微生物可能影响肠道菌群、肠屏障和免疫平衡。
牙周炎与炎症性肠病之间的微生物相关性
编辑
doi: 10.3389/fcimb.2023.1132420
⑤呼吸道健康:对老年、吞咽障碍尤其重要
口腔是上呼吸道和下呼吸道微生物的重要来源之一。对吞咽功能差、长期卧床、气管插管、免疫低下者,口腔病原菌可能通过微误吸进入下呼吸道。
⑥自体免疫疾病
牙周相关菌可通过异常瓜氨酸化、抗瓜氨酸化蛋白抗体形成及免疫失衡,参与自身免疫反应。与系统性红斑狼疮、类风湿性关节炎等存在一定关联。
类风湿性关节炎发病机制中的口腔-肠道-免疫-营养轴
编辑
doi: 10.3390/ijms27052385
⑦神经系统疾病
与阿尔茨海默病、帕金森病和认知下降相关,可能通过全身炎症、血脑屏障受损及神经免疫激活影响大脑。
口脑轴及在阿尔茨海默病中的作用
编辑
doi: 10.1080/20002297.2026.2635233.
抑郁、焦虑、自闭症谱系障碍和精神分裂症可观察到口腔菌群差异,但目前多为相关性证据,易受饮食、用药、吸烟和口腔卫生等因素影响。
口腔微生物群影响神经精神疾病的可能机制
编辑
doi.org/10.1016/j.bbr.2024.115111
⑧多种肿瘤
口腔菌群与口腔癌、食管癌、胃癌、结直肠癌、肺癌、胰腺癌等存在关联,可能涉及慢性炎症、免疫逃逸、致癌代谢物及病原体迁移。
具核梭杆菌促进结直肠癌进展的机制
编辑
doi: 10.1080/20002297.2026.2635233.
正因如此,受检者虽然只是做了一次口腔菌群检测,报告却同时给出了口腔消化疾病、心血管疾病、神经系统疾病、代谢疾病、呼呼吸系统疾病、⾃体免疫疾病、肿瘤相关疾病等多个维度的风险评估。这并非”夸大其词”,而是基于口腔菌群与全身疾病已被反复验证的关联机制。
为干预效果提供”可量化”的追踪
健康管理的难点之一,是“不知道干预有没有用”。你开始认真刷牙、用牙线、调整饮食,三个月后口臭轻了些——但这是菌群真的改善了,还是只是暂时的?你做了龈下刮治,牙龈不出血了——但致病菌是不是真的减少了?没有检测,这些问题只能靠感觉回答。
用数据变化说明问题
菌群检测提供了“可量化”的追踪手段。干预前测一次,建立基线;干预 3–6 个月后复测,对比超标病原菌的倍数变化、有益菌的恢复情况、风险评分的升降。
这些数字是未来评估“干预是否有效”的标尺。如果复测时这些数字明显下降,说明干预方向正确;如果不降反升,则需要调整策略。这种”用数据说话”的闭环,是传统”凭感觉”无法实现的。
提升健康意识与依从性
最后一个常被低估的价值:检测本身能显著提升一个人的健康意识和行为依从性。心理学里有个”健康信念模型”——人们是否采取健康行为,很大程度上取决于他们是否”感知到风险”并”相信行动有效”。
很多人在看到自己的菌群报告后,会第一次认真学怎么用牙线、第一次主动减少含糖饮料、第一次预约牙周专科。这种“被数据触动”的行为改变,是检测最朴素也最实在的价值。
口腔菌群检测并非”人人都必须做”,对于没有口腔症状、口腔检查正常、定期洁牙、生活方式稳定的人,常规口腔检查和预防护理已非常重要,菌群检测可以作为可选项目。以下几类人群,做检测通常更有现实意义。
口腔疾病反复发作或久治不愈者
如果你属于以下情况,检测有助于帮你找到“治标不治本”的根源:
编辑
• 反复龋齿:补了又蛀、蛀了又补,尤其根面龋、邻面龋频发。检测可明确是否存在变异链球菌、龋齿放线菌等致龋菌的持续高负荷,以及是否有韦荣氏球菌等”耐酸帮凶”。
• 牙周炎反复发作:洁治后不久又出血、牙周袋反复加深。检测可评估龈下致病菌(牙龈卟啉单胞菌、齿垢密螺旋体、福赛坦纳菌等)是否未被清除,是否存在耐药生物膜。
• 顽固性口臭:各种漱口水、口香糖都试过,口臭依旧。检测可定位是舌背产硫菌(莫氏细小杆菌、极小陌生菌)还是牙周袋厌氧菌(产黑色素普雷沃氏菌)主导,从而精准干预。
• 根管治疗反复失败:检测可排查粪肠球菌等顽固耐药菌的定植。
患有全身慢病、希望协同管理者
口腔菌群与全身慢病的关联已被反复验证,以下人群尤其值得检测:
编辑
• 心血管疾病患者或高危人群:牙周致病菌入血定植血管壁、驱动内皮炎症是动脉粥样硬化的促发因素之一。提示口腔菌群可能是心血管风险的一个”隐形推手”。
• 糖尿病患者:牙周炎与糖尿病是“双向恶化”关系——糖尿病增加牙周感染风险,牙周炎加重胰岛素抵抗。研究显示,有效治疗牙周炎可使糖尿病患者的糖化血红蛋白(HbA1c)下降约 0.4%。
• 代谢综合征/肥胖人群:口腔菌群参与能量摄取和炎症调节,产黑色素普雷沃氏菌等与肥胖相关。
• 幽门螺杆菌感染者、胃癌高危人群:口腔是幽门螺杆菌(Hp)的储存库,口腔菌群失调还可能促进亚硝胺生成。
• 阿尔茨海默病高危/认知下降人群:牙龈卟啉单胞菌及其毒力因子已在AD 患者脑组织中被检出。
但必须明确:牙周治疗不能替代全身慢病治疗,口腔菌群检测也不能用于诊断全身慢病。
备孕、孕期及围绝经期女性
青春期、妊娠期和更年期的激素波动,都可能影响牙龈血流、局部免疫和菌群生态。牙周炎是早产低体重儿的独立危险因素(风险约升高 2–3 倍),备孕期做一次菌群检测、提前处理牙周风险,比孕期发现再处理要安全得多——孕期尤其是孕早期,许多牙科治疗受限。
编辑
备孕前建议完成:
孕期出现牙龈出血和肿胀很常见,但不应忽略。涉及药物、强效漱口水或益生菌补充时,应由口腔医生与产科医生共同评估。
种植、正畸、复杂修复前后的人群
种植体、冠桥、贴面、活动义齿、隐形矫治器和固定托槽都可能带来新的清洁死角。
对于牙周炎史、龋病高风险、吸烟者、糖尿病患者或口腔清洁困难者,菌群检测可辅助制定更严格的维护方案,但仍需以临床检查和定期维护为主。
儿童和青少年
儿童口腔菌群处于动态建立阶段,受母婴传播、家庭环境、饮食、牙齿萌出、抗生素暴露、口腔卫生习惯等影响。
编辑
适合关注的情况包括:
儿童检测结果必须结合年龄、乳牙或恒牙状态、饮食和家庭护理情况理解,不能照搬成人参考范围,更不能因为“菌群异常”而随意使用抗生素或强消毒产品。
老年人及吞咽功能下降者
老年人常见口干、根面龋、牙周病、义齿清洁不良、吞咽能力下降和多重用药。对卧床、脑卒中后、认知障碍、帕金森病或吞咽障碍人群,口腔卫生还与误吸性肺炎风险相关。
检测可评估口腔是否存在肺炎链球菌、金黄色葡萄球菌、铜绿假单胞菌及厌氧菌的高负荷,并通过强化口腔护理降低误吸风险。
这类人群重点不是追求复杂菌群“优化”,而是:
长期不良生活习惯者
除此之外,以下人群也值得检测:
编辑
拿到报告后,“怎么办”才是关键。本章把干预手段按“基础且证据更扎实”到“辅助或新兴方法”排列,逐一讲解如何”结合菌群”来干预。对绝大多数人来说,最有效的不是昂贵的产品,而是规范清洁、专业治疗和长期生活方式改变。
口腔卫生:把”机械清洁”做到位
✔巴氏刷牙法:每天两次,每次不少于 2 分钟。 关键不是”刷得用力”,而是“刷得到位”——刷毛与牙面成 45°,指向牙龈方向,小幅度(2–3 颗牙)水平颤动,然后向冠方拂刷。这个角度能让刷毛进入龈沟 1 毫米左右,清除那里的菌斑。
✔牙线或牙间隙刷:牙刷只能清洁牙面的 60%,剩下的 40% 在牙缝里,只能靠牙线或间隙刷。邻面是龋齿和牙周炎的高发区。
✔舌苔清洁:这是最被忽视的一步,用舌刮或牙刷轻刷舌背,从舌根向舌尖方向刮 3–5 次,能显著减少产硫菌负荷和挥发性硫化物。研究表明,舌刮可使口臭相关 VSC 降低约 50–70%。
✔冲牙器是辅助:冲牙器对清除食物残渣、冲洗矫治器周围和改善部分牙龈炎有帮助,但对紧密邻接面成熟菌斑的机械刮除能力通常不如牙线或牙间隙刷。
✔含氟牙膏:氟化物通过促进牙釉质再矿化、抑制致龋菌代谢,是预防龋齿最有效、证据最充分的手段(A 级证据)。
注:成人建议含氟浓度 1000–1500 ppm。
专业治疗:先除病灶,再谈生态恢复
菌群检测提示风险,但真正的”清除”往往需要专业手段。
✔定期洁治(洗牙):牙结石是钙化的菌斑,表面粗糙、持续吸附细菌,靠刷牙无法清除。超声波洁治能去除龈上牙石和色素,是控制菌斑的基础。
✔龈下刮治与根面平整:针对牙周袋,当深度超过 4 毫米,龈下菌斑和牙结石已无法用普通洁治清除,需要局麻下用刮治器深入牙周袋,平整根面、清除生物膜。这是牙周炎治疗的”金标准”,对降低龈下致病菌(牙龈卟啉单胞菌、齿垢密螺旋体等)负荷至关重要。
✔龋齿及时修复:一旦发现龋洞,尽早充填,防止病变深入牙髓。
✔根管感染的处理:粪肠球菌等耐药菌导致的根管持续感染,可能需要根管再治疗或显微根尖手术,配合根管内封药。
✔必要时的抗菌辅助:对于特定致病菌高负荷、机械治疗效果不佳的情况,牙医可能建议局部或全身抗菌药物(如米诺环素凝胶、甲硝唑等),但必须在专业指导下使用,避免滥用加剧菌群失调。
菌群调节:使用特定口腔益生菌
益生菌治疗的目标是用非致病微生物替代有害的本地微生物。益生菌常被用于治疗各种口腔和牙科疾病,如牙周病、口臭、龋齿和口腔念珠菌病等。
益生菌如唾液链球菌(Streptococcus salivarius M18、Streptococcus salivarius K12)、植物乳杆菌(Lactobacillus plantarum)、乳双歧杆菌(Bifidobacterium lactis)、罗伊氏乳杆菌(Lactobacillus reuteri)和唾液乳杆菌(Lactobacillus salivarius),已经证明了它们在支持口腔健康方面的功效。
• 唾液乳杆菌(Lactobacillus salivarius):可以产生强大的抗菌蛋白,称为细菌素,这可能对各种细菌的生长有害。此外,实验室研究表明,唾液乳杆菌直接与牙龈上皮细胞结合,表现出抗炎特性并促进和谐的免疫反应。L. salivarius (WB21 和 TI 2711)可能通过包括对变异链球菌的凝聚和生长抑制等机制减少龋齿,同时降低牙菌斑的产酸性。
• 罗伊氏乳杆菌(Lactobacillus reuteri):分泌罗伊氏菌素,抑制牙龈卟啉单胞菌、具核梭杆菌等牙周致病菌,多项 RCT 显示可减轻牙龈炎出血指数。L. reuteri (DSM 17938 和 ATCC PTA 5289)已被证明能显著减少口臭。
• 乳双歧杆菌(Bifidobacterium lactis):B.lactis HN019在临床牙周指标方面显著改善,牙周病原体减少更有效率,牙龈软骨液中的促炎细胞因子水平下降。
•植物乳杆菌(Lactobacillus plantarum):L.plantarum在抑制变异链球菌和白色念珠菌的生长、破坏致病性生物膜的形成,以及影响关键代谢通路、真菌耐受性和氧化应激相关基因表达方面表现出显著效果。
• 副干酪乳杆菌(Lactobacillus paracasei):可抑制变异链球菌,辅助降低龋齿风险。
•唾液链球菌 K12 / M18(Streptococcus salivarius):定植舌背,产生细菌素,抑制产硫菌和致病菌,对口臭和反复咽炎有循证支持。
还有研究认为,L. reuteri RC-14, L. rhamnosus GR-1和L. reuteri ATCC PTA 5289可能通过与酵母共聚,阻碍白色念珠菌的发育,从而避免其他病原体进入口腔表面。
注意
个性化口腔护理方法
除了益生菌,全面的口腔护理方案还能支持牙齿和牙龈的自然愈合,与人体口腔化学反应相协调,促进口腔健康。
✔木糖醇相关产品有助于减少变异链球菌
木糖醇是帮助调节口腔酸性的重要成分,定期使用木糖醇薄荷和口香糖与变异链球菌(S. mutans)数量减少相关,可能降低牙菌斑的附着性。
这些产品包括木糖醇、天然薄荷香、硬脂酸镁和天然薄荷。
木糖醇一旦被变异链球菌吸收,会显著干扰该细菌的正常能量生成途径,从根本上改变其生长和生存机制。与其他糖类不同,木糖醇无法被变异链球菌加工为能量,这会扰乱细菌正常的新陈代谢过程。这种破坏导致细菌细胞内木糖醇转化为木糖醇-5-磷酸,形成液泡并损伤细胞膜。这些变化阻碍了细菌的生长和存活能力。
此外,变异链球菌试图将脱磷酸化的木糖醇-5-磷酸排出细胞,但木糖醇代谢无能量,实际上使细菌饥饿,阻碍其生长,最终导致其死亡。同时,木糖醇还能刺激唾液分泌,有助于中和酸性环境。
✔针对特定口腔病原体的抗菌药物
甲硝唑:一种外用药物,对口腔内的专性厌氧微生物有效,包括来自感染坏死性牙髓的微生物。在体外实验中,甲硝唑抑制了超过99%的蛀牙病变和感染牙根质中的细菌。
青霉素:已被证明对多种革兰氏阳性链球菌和葡萄球菌菌株,以及某些革兰氏阴性菌有效。
氯己定:氯己定破坏唾液中酸性糖蛋白基团,可减少斑块粘附。它还通过粘附细胞外多糖或与钙离子竞争菌斑中的粘附,防止细菌粘附牙齿表面。
✔氯二氧化物(ClO2)有助于改善口臭和除菌
氯二氧化物(ClO2)作为目标化合物,通过顺序机制作用于挥发性硫化合物(VSCs),这些硫化合物是口腔臭味的主要来源。
最初,ClO2与硫醇化合物如L-半氨酸反应,生成ClO2−和硫醇自由基(RS.),随后将硫醇化合物转化为二硫键,如半胱氨酸。硫醇化合物的还原过程通过生成二硫化物进行,从而解决异味硫醇。同时,ClO2通过渗透细菌细胞并破坏细胞质氨基酸和膜蛋白,导致微生物细胞死亡,展现出杀菌特性。
✔不同种类的抗菌肽
抗菌肽广泛存在于人体内,具有抗微生物活性,被认为是清除口腔病原体的潜在有效分子。
口腔中最常见的抗菌肽包括α-和β-防御素(以hNP表示)、组胺、statherin、肾上腺髓质素、天青杀素和cathelicidins(LL37)。
一项研究显示,LL37/hCAP18衍生的合成肽对血链球菌具有增强的杀菌活性。此外,在与人类 b-defensins 比较时,发现 LL37 对包括 S.mutans、S. sanguinis、S. salivarius和 S. mitis在内的一组口腔细菌具有更高的活性。
Statherin(富酪蛋白)存在于唾液和龈盂液中,能抑制口腔内厌氧菌的生长。
Azurocidin是一种存在于唾液中的蛋白质,通过强结合脂多糖对革兰氏阴性菌表现出强效的抗菌活性。
✔精油也可以有效针对口腔病原体
精油(EOs)具有抗菌、抗真菌和抗炎作用,可通过破坏细胞膜通透性、诱导细胞成分泄漏,以及促进活性氧生成来干扰蛋白质合成和细胞分裂,最终导致微生物死亡。
在多种口腔病原体中,变异链球菌(S. mutans)对精油最敏感,其次为S. sobrinus、唾液链球菌(S. salivarius)、血链球菌(S. sanguis)和嗜酸乳杆菌(L. acidophilus)。
有限研究显示,牛至油可抑制白色念珠菌生物膜附着和形成。精油漱口水也可能减少牙菌斑、牙龈炎和牙周炎,可作为氯己定的辅助或替代选择。甜橙、苦橙、柠檬、酸橙、葡萄柚、佛手柑、柚子和金桔等柑橘类精油用于漱口水时亦显示出潜在药用价值。
谷禾口腔菌群检测报告会结合个人检测结果,提供针对性的个性化干预建议。
编辑
口腔微生物移植
口腔疾病的替代治疗之一是口腔微生物群移植(OMT),这是一种通过改变微生物群失调以恢复微生物生态平衡的治疗方式。
OMT旨在将健康供体的口腔生物移植至龋病或牙周炎患者。其流程包括:从无龋供体(可为患者家属)采集牙菌斑,以生理盐水保存,再用尼龙拭子涂布于龋活跃患者牙面。
注:理想供体应具有稳定、健康的口腔微生态,无致龋菌,尤其无变异链球菌,且糖刺激后口腔pH下降较小。
✔OMT可调节免疫与竞争病原菌
物种间相互作用和免疫调节可能是OMT发挥作用的重要机制。研究提示,OMT可降低IL-1、IL-6、TNF-α和TGF-β水平,从而减轻相关的炎症。
OMT可能通过在口腔定植、竞争病原菌的黏附位点和营养物质、产生细菌素及过氧化氢,并调节局部和全身免疫反应发挥作用。但移植生物膜需能适应受体口腔环境,并长期维持有益效应。
OMT的安全性要求与口服益生菌相似:供体生物膜应无病原风险且遗传稳定。然而,其具体机制和最佳实施方式仍不明确,例如应直接移植健康供体生物膜,还是预处理以减少潜在致病菌;体外培养生物膜与天然共生生物膜何者更优,也尚待研究。现有证据表明,具有促健康特性的临床菌株生物膜可能有助于干扰或替代疾病相关生物膜。
饮食调理:喂”好菌”、饿”坏菌”
饮食是塑造口腔菌群最强大的日常力量之一。
✔控糖,尤其是减少游离糖的摄入频率:致龋菌的”燃料”是糖,而且关键是“频率”而非”总量”——一天喝一杯含糖饮料,比一次性吃很多糖更伤牙,因为每次摄糖后菌斑 pH 会低于 5.5 持续 20–30 分钟。建议减少含糖饮料、甜食、零食,摄糖后及时漱口。
✔增加膳食纤维: 蔬菜、全谷物等富含纤维的食物需要充分咀嚼,能刺激唾液分泌、机械清洁牙面,同时纤维发酵产物有利于有益菌。唾液本身含缓冲物质(碳酸氢盐)和抗菌蛋白(sIgA、乳铁蛋白、溶菌酶),是天然的”护牙液”。
编辑
✔适量摄入发酵食品:无糖酸奶、纳豆、泡菜等发酵食品含活菌,对口腔和肠道菌群都有正向调节作用。罗伊氏乳杆菌偏少,适量摄入发酵乳制品是天然的补充途径。
✔硝酸盐丰富的蔬菜:菠菜、芹菜、甜菜根等富含硝酸盐,口腔里的奈瑟菌、韦荣氏菌能将其还原为亚硝酸盐来抑制致病菌并有益于心血管健康。
硝酸盐在口腔和全身健康中的作用示意图
编辑
Washio and Takahashi, 2025
✔避免长期饮酒和过烫饮食:酒精改变口腔 pH、抑制唾液分泌、促进念珠菌增殖;过烫饮食损伤黏膜屏障,为细菌入血创造条件。
✔多酚和类黄酮:最近的证据表明,食物来源的天然产品,尤其是多酚和类黄酮,作为P. gingivalis毒力因子的强效抑制剂,专门针对牙龈蛋白酶(Rgp和KGP)以减弱细菌的致病性。这些化合物不仅抑制细菌生长和生物膜形成,还通过干扰膜结合的特异性转运酶破坏能量代谢。
✔姜黄素:作为一种多酚化合物,具有抗炎、抗氧化、抗菌特性。它通过调节关键的炎症通路(如NF-κB)和氧化应激反应,展现出对多种口腔疾病的治疗潜力,如牙周病、龋齿、复发性口腔炎等。
编辑
DOI:10.3389/FPHAR.2025.1661443
全身健康协同:口腔不是孤岛
✔戒烟:吸烟是牙周炎最重要的可控危险因素,会显著改变菌群结构、抑制免疫、减少牙龈血流。戒烟后,牙周治疗效果和菌群恢复都会明显改善。
✔控制血糖:糖尿病患者唾液葡萄糖升高,为致龋菌和念珠菌提供”养料”,同时微血管病变削弱牙周组织修复。控制血糖是糖尿病合并牙周炎的”双线作战”。
✔管理压力与睡眠:长期压力和睡眠不足会降低 sIgA 和唾液分泌、改变菌群组成。虽然证据等级需审慎看待,但压力管理对口腔和全身菌群都有益。
✔谨慎使用抗生素:避免无指征使用广谱抗生素,必要时配合益生菌,减少对口腔和肠道菌群的”误伤”。
注意:不同人群的“菌群干预重点”并不一样
编辑
定期复测:形成管理闭环
干预不是一次性的,需要”检测→干预→复测→调整”的闭环。建议干预 3–6 个月后复测一次,重点看:超标致病菌倍数是否下降、有益菌是否恢复、风险评分是否降低。如果数字改善,说明方向正确;如果未改善,则需调整干预策略或寻求进一步专科治疗。
口腔菌群检测的真正价值,不是制造新的焦虑,也不是让人执着于某一个菌名或一个百分比,而是帮助我们换一种视角理解口腔健康。过去,我们只问:有没有蛀牙?牙龈有没有出血?口气重不重?
未来,我们还应关注:
当然,检测不是给健康贴标签,更不是替代牙科检查的“万能答案”。其价值在于风险评估与健康管理,并应与牙周探诊、口腔影像、龋病检查及必要的全身检查相结合。重点不在于报告中有多少陌生菌名,而在于能否据此采取行动:科学刷牙和使用牙线,做好舌苔与牙缝清洁,减少频繁摄糖,及时接受专业牙周治疗,并将口腔健康纳入整体健康管理。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Guo ZL, Cui MW, Dong YL, Wang S. The oral microbiome as a regulatory hub for systemic health: a systematic review of mechanistic links and clinical implications. J Oral Microbiol. 2026 Mar 3;18(1):2635233.
Liu S, Wang S, Zhang N, Li P. The oral microbiome and oral and upper gastrointestinal diseases. J Oral Microbiol. 2024 Jun 3;16(1):2355823.
Rajasekaran JJ, Krishnamurthy HK, Bosco J, Jayaraman V, Krishna K, Wang T, Bei K. Oral Microbiome: A Review of Its Impact on Oral and Systemic Health. Microorganisms. 2024 Aug 29;12(9):1797.
Bostanghadiri N, Kouhzad M, Taki E, Elahi Z, Khoshbayan A, Navidifar T, Darban-Sarokhalil D. Oral microbiota and metabolites: key players in oral health and disorder, and microbiota-based therapies. Front Microbiol. 2024 Aug 20;15:1431785.
Baker JL, Mark Welch JL, Kauffman KM, McLean JS, He X. The oral microbiome: diversity, biogeography and human health. Nat Rev Microbiol. 2024 Feb;22(2):89-104.
Xiao J, Fiscella KA, Gill SR. Oral microbiome: possible harbinger for children’s health. Int J Oral Sci. 2020 Apr 30;12(1):12.
Chandra Nayak S, Latha PB, Kandanattu B, Pympallil U, Kumar A, Kumar Banga H. The Oral Microbiome and Systemic Health: Bridging the Gap Between Dentistry and Medicine. Cureus. 2025 Feb 12;17(2):e78918.
Belibasakis GN, Bostanci N, Marsh PD, Zaura E. Applications of the oral microbiome in personalized dentistry. Arch Oral Biol. 2019 Aug;104:7-12.
Krishnan K, Chen T, Paster BJ. A practical guide to the oral microbiome and its relation to health and disease. Oral Dis. 2017 Apr;23(3):276-286.
Burcham ZM, Garneau NL, Comstock SS, Tucker RM, Knight R, Metcalf JL; Genetics of Taste Lab Citizen Scientists. Patterns of Oral Microbiota Diversity in Adults and Children: A Crowdsourced Population Study. Sci Rep. 2020 Feb 7;10(1):2133.
Zaura E, Pappalardo VY, Buijs MJ, Volgenant CMC, Brandt BW. Optimizing the quality of clinical studies on oral microbiome: A practical guide for planning, performing, and reporting. Periodontol 2000. 2021 Feb;85(1):210-236.
谷禾健康
Veillonella denticariosi(龋齿韦荣氏球菌)是一种严格厌氧的革兰阴性口腔球菌,最初从人类龋坏牙本质分离。其在人群中相对少见:在健康成人口腔多仅于少数龈上牙菌斑样本检出,但在儿童龋损、龋坏牙本质及部分儿童牙面生物膜中可见。
其关键生理特征在于以乳酸等短链有机酸为能源,并将其转化为丙酸盐、乙酸盐、CO₂和H₂。菌群互作方面,它可能通过乳酸交叉喂养与链球菌、乳酸杆菌、放线菌等产酸菌共生,并作为口腔 Veillonella 属成员参与早期牙菌斑构建、代谢网络维持及多物种生物膜成熟。属层面证据亦提示 Veillonella 可能充当桥接菌或辅助病原体,促进更厌氧、更致病菌群的定植。
在疾病关联中,现有证据中最明确的是龋齿。更可能的解释是:V. denticariosi 属于适应龋损生态位的乳酸利用者,并可作为口腔菌群失衡的标志之一,而非单独的主致龋病原体。其种水平耐药谱数据仍不足,但口腔Veillonella属整体存在四环素耐药、β-内酰胺酶相关基因及生物膜耐受风险,因而值得在临床与微生态研究中持续关注。
本文将围绕“V.denticariosi是什么、在哪儿更常见、能做什么等”展开梳理,帮助更科学地理解其在人体健康,尤其是儿童龋齿发生发展中的可能作用,并明确还需要哪些证据以推动相关性走向更可靠的机制层面。
Veillonella denticariosi是一种源自人类口腔的革兰氏阴性厌氧球菌,最初分离自龋坏牙本质。它属于口腔 Veillonella 群体中的一个相对低丰度、部位偏向明显的物种。
1
分类和基因组特征
▸ 分类学
Veillonella denticariosi属于广义厚壁菌门(Firmicutes sensu lato)、Veillonellaceae科下Veillonella属。
注:虽然它归入 Bacillota/Firmicutes 大类,但具有革兰阴性样双层细胞包膜结构,因此染色表现为革兰氏阴性。
▸ 模式株与基因组信息
主要模式株:
•V. denticariosi JCM 15641ᵀ
•DSM 19009
•CCUG 54362
•CIP 109448
•KCTC 15017
•RBV106
V. denticariosi JCM 15641ᵀ 的基因组大小约为1.98 Mb,G+C 含量为42.9%,高于多数其他口腔Veillonella,如V.parvula、V.dispar、V.rogosae 多在 38–39% 左右。
Veillonella物种模式株16S rRNA序列的系统发育树
编辑
doi: 10.1099/ijs.0.65096-0.
2
细胞形态与结构
V. denticariosi的已知形态符合Veillonella 属典型特征:
•小型球菌(球形/肾形,直径 0.3–0.5 μm);
•革兰氏阴性;
•严格厌氧;
•不形成芽孢;
•无鞭毛,无运动性;
•一般不具备明显荚膜;
•可单个、成对、短链或团块状聚集。
细胞超薄切片的电子显微照片
编辑
doi: 10.1099/ijs.0.65096-0.
3
生长环境
▸ 最初分离来源
V. denticariosi最初来自:
这说明它具有适应龋坏牙本质微环境的能力。
▸ 适宜的生长环境
已知或推断适宜环境包括:
健康口腔常见条件为:温度约 33.2–38.2°C、pH 接近中性、唾液流动和菌群平衡稳定。
但在牙菌斑和龋损中,环境会变为:
这些条件有利于Veillonella利用乳酸生长。
4
人群和口腔中的分布
Veillonella属是人类口腔中常见且较丰富的菌群成员,但V.denticariosi并不是最常见的优势种。
口腔Veillonella菌种类数量,基于口腔卫生状况
编辑
doi: 10.3390/ijerph192113998.
▸ 龋损部位中更易存在V. denticariosi
儿童龋损与无龋部位研究显示,V. parvula、V. dispar 和 V. atypica 可同时见于龋损和健康部位,而 V. denticariosi 仅在龋损部位中检出,V.rogosae 仅见于无龋样本。龋损部位的 Veillonella多样性低于健康牙面,且更常由单一 Veillonella 种占优势。
编辑
尽管 V. denticariosi 检出数量不高,但其仅出现在有龋儿童的龋损中,提示其具有一定的疾病部位特异性。
▸V. denticariosi在正常儿童中也可能存在
在印尼一项针对 60 名 6–7 岁儿童的研究中,营养正常儿童 31 名、发育迟缓儿童 29 名;结果显示,营养正常儿童的V. denticariosi水平高于发育迟缓儿童。
因此,在某些儿童龈上牙面生物膜中,V.denticariosi可作为正常的可检测菌群成员;但在龋损研究中,它又表现出龋损相关性。因此它的生态意义可能高度依赖部位、年龄、人群和疾病。
Veillonella在口腔生物膜中的生态和代谢作用
编辑
doi: 10.3389/froh.2026.1740043.
5
代谢能力
▸ 核心代谢特征:乳酸利用
Veillonella属最典型的生理特征是:不能或很弱地利用多数糖和氨基酸作为主要能源,而主要发酵短链有机酸,尤其是乳酸。
一般认为,Veillonella 缺乏完整的糖发酵能力,不能像Streptococcus mutans那样直接利用蔗糖或葡萄糖大量产酸,主要依赖其他细菌产生的乳酸等有机酸。其主要底物包括乳酸、丙酮酸、苹果酸、富马酸、草酰乙酸,部分情况下可利用琥珀酸;泛基因组分析还提示其可能具有果糖和半乳糖相关代谢潜力。
主要代谢产物为乙酸盐、丙酸盐、CO₂和H₂。
▸ 果糖代谢能力
早期认为 Veillonella 主要不能利用糖,但 2021 年比较泛基因组研究发现,包括V. denticariosi在内的八种口腔 Veillonella 均保守携带果糖代谢通路,提示其在一定条件下除乳酸外也可能利用果糖供能。
该通路大致为果糖进入 EMP 途径中间产物,并进一步转化为乙酸盐和丙酸盐。不过,这一结论主要基于基因组预测,仍需体外代谢组和培养实验验证。
▸ 硫胺素/维生素B1相关代谢
部位专一性研究显示,牙菌斑和角化牙龈专一性 Veillonella 更可能保留硫胺素合成相关基因,而舌背专一性菌株则缺失部分合成基因,可能依赖邻近菌提供硫胺素或其前体;同时,所有口腔 Veillonella 均具有硫胺素转运相关能力。
V.denticariosi在健康样本中仅少量见于龈上菌斑,且在泛基因组中与V. parvula类群较近,因此可能更适应牙菌斑生态位,但其硫胺素通路是否完整仍需结合具体基因组注释确认。
▸ 酶活性
V.denticariosi记录的较稳定酶活性包括:
阳性或可阳性:
•过氧化氢酶—阳性;
•酸性磷酸酶—阳性;
•萘酚AS-BI磷酸水解酶—阳性;
•酯酶—部分记录可阳性。
阴性:
•氧化酶—阴性;
•脲酶—阴性;
•吲哚—阴性;
•碱性磷酸酶—阴性;
•多数糖苷酶—阴性;
•多数芳基酰胺酶—阴性;
•胰蛋白酶—阴性;
•α-胰凝乳蛋白酶—阴性;
•谷氨酸脱羧酶—阴性;
•精氨酸双水解酶—阴性。
这些特征总体支持:V.denticariosi的糖降解酶谱较弱,更依赖乳酸、有机酸及有限的碳水化合物旁路代谢。
注:还有研究发现Veillonella 可通过胱硫醚 β-合成酶/裂解酶由L-半胱氨酸产生少量 H₂S;该能力主要为属水平特征,V.denticariosi的具体产率报道较少,且低于F.nucleatum。
6
耐药性(药敏概况)
V. denticariosi 的种水平证据有限,现有文献尚未提供其系统性或临床药敏谱,因此不能直接断定其对某类抗生素必然耐药;但可从口腔Veillonella 属水平推测其潜在耐药风险。
▸ 通常敏感
甲硝唑、克林霉素、β‑内酰胺类(氨苄西林、哌拉西林/他唑巴坦、头孢西丁、亚胺培南)—研究发现多数 Veillonella 临床株对碳青霉烯类敏感。
▸ 四环素耐药
口腔Veillonella 属曾被认为是口腔中四环素耐药基因的储存库之一。因此 V. denticariosi 作为口腔 Veillonella 成员,也需要关注四环素耐药潜力。
▸ 需注意β-内酰胺类耐药性
传统上,Veillonella 常被认为对:青霉素、氨苄青霉素、阿莫西林较敏感。但近年来口腔 Veillonella 对青霉素/阿莫西林耐药的报道增加。
▸ 生物膜增强耐受
即便菌株本身抗生素耐药性不高,生物膜状态下也可能表现出更高抗菌耐受性。口腔Veillonella 可参与多菌种生物膜成熟,因此可能通过以下方式间接增强抗菌耐受:
•参与细胞外基质结构;
•促进多物种空间聚集;
•降低氧化压力;
•与其他菌共享代谢产物;
•提供水平基因转移平台。
7
与人体的相互作用
▸ 正常定植与生态位适应
V. denticariosi是人类口腔相关菌,但并非普遍高丰度常驻优势种。它主要与以下生态位相关:
它与人体的关系更接近低丰度共生菌、条件性生态位适应菌或潜在病原菌:在健康生态中可作为低丰度正常菌群存在,但在酸化、乳酸富集、厌氧增强或菌群失衡时,可能扩增并参与疾病相关生态。
▸ 免疫刺激
作为革兰阴性菌,V. denticariosi 理论上具有:
属层面研究显示,部分Veillonella,尤其V.parvula,其 LPS 可通过 TLR4 相关通路激活巨噬细胞并促进炎症;肠道中过量V. parvula 也可加重炎症。但 V. denticariosi 的免疫活性缺乏直接研究,因此只能谨慎推断其可能具有革兰阴性菌共有的免疫刺激潜力,而其炎症强度、受体通路及临床意义仍不明确。
▸ 与营养的潜在联系
印尼儿童研究首次提示,V. denticariosi数量与儿童营养状态存在统计关联:其在正常营养儿童中高于发育迟缓儿童,在口腔卫生良好儿童中高于中等或较差者。
该研究认为,V.denticariosi、V.infantium、V.rogosae和V.tobetsuensis可能作为儿童发育迟缓的潜在临床生物指标。但该研究为横断面设计,无法证明因果关系,合理解释包括:
8
与其他菌群的相互作用
▸ 与链球菌的乳酸交叉喂养
这是 Veillonella 最核心的生态关系。链球菌,尤其是口腔早期定植菌和产酸菌(如Streptococcus mutans、Streptococcus gordonii、Streptococcus sanguinis、Streptococcus mitis),可代谢糖产生乳酸;Veillonella 则以乳酸为主要能源,将其转化为丙酸盐和乙酸盐,促进共生生长。
二者共同推动早期牙菌斑结构形成和代谢网络建立。在龋病环境中,V. denticariosi 可能利用S.mutans、乳杆菌等产乳酸菌产生的乳酸,在龋损内增殖。
▸ 对链球菌生物膜的促进作用
属层面研究显示,口腔Veillonella可促进链球菌生物膜形成。机制包括:
例如,V. tobetsuensis与Streptococcus gordonii 在早期口腔生物膜形成中存在明确互作。尽管这并非 V. denticariosi 的直接证据,但提示口腔 Veillonella 可能普遍参与链球菌生物膜构建。
▸ 作为桥接菌
研究发现,Veillonella是一种重要的“桥接菌”,可连接早期定植菌(Streptococcus、Actinomyces)、中期定植菌(Fusobacterium nucleatum)及晚期厌氧病原菌(Porphyromonas gingivalis、Tannerella、Treponema 等)。
作用方式包括:
▸ 与Fusobacterium nucleatum的关系
具核梭杆菌(Fusobacterium nucleatum)是典型的中期桥接菌,Veillonella可与其共存并促进厌氧生态建立。V. denticariosi 的过氧化氢酶阳性提示其可能分解 H₂O₂,降低链球菌等产生的氧化压力,从而有利于F. nucleatum等更严格厌氧菌定植。
注:但这一机制仍属推断,需V. denticariosi直接共培养证据支持。
▸ 与其他牙周病原菌的关系
属层面研究显示,Veillonella可通过提供血红素/氯化血红素相关支持、可溶性因子、降低氧化压力及参与生物膜空间结构形成,促进Porphyromonas gingivalis的定植和生长。
因此,Veillonella 可被视为辅助病原体:自身未必强致病,却能帮助更强病原菌定植、扩增并发挥致病性。
注:对 V. denticariosi 而言,这种作用仍缺乏直接实验证据,但作为口腔 Veillonella 成员,其可能具备部分相关生态功能。
关于Veillonella denticariosi(龋齿韦荣氏球菌)在疾病与健康中的作用,现有证据主要集中于三个方面:其在口腔生态系统和健康状态中的功能、与龋病及牙周病等口腔疾病的关联,以及与口腔外健康结局的潜在联系及证据局限。
总体来看,V. denticariosi 并非一个已被充分证实的单一致病菌,更适合作为口腔生物膜生态变化的物种级标志物来理解。其生物学意义并非固定不变,而是取决于其所在的口腔部位、共存菌群结构以及疾病发生发展的不同阶段。
V.denticariosi 在健康中的作用
◮ 维持生物膜代谢平衡
属层面看,Veillonella在健康口腔中的潜在有益作用包括:
但对V. denticariosi来说,它在健康人群中通常不是高丰度优势种。
◮ 牙菌斑低丰度成员
在口腔部位专一性研究中,V.denticariosi的检出十分有限,仅在两个龈上菌斑样本中被检测到。这一结果提示,在健康成人的口腔微生物群中,V.denticariosi并不是常见或广泛存在的成员,其丰度和出现频率可能都相对较低。
然而,来自印尼儿童的研究显示,V. denticariosi 在儿童第一恒磨牙牙面生物膜中可以达到较高丰度,并且在正常营养状态和良好口腔卫生的儿童组中更为丰富。由此可见,V. denticariosi的生态意义可能具有年龄和部位相关性:它在健康成人口腔中并不常见,但在特定儿童牙面生物膜生态中,可能是正常菌群的一部分。
V.denticariosi在疾病中的作用及丰度变化
编辑
◮ 龋齿(儿童早期龋齿)—最相关
这是V. denticariosi最明确的相关疾病。
证据:
可能作用机制:
编辑
因此,更恰当的结论是:V. denticariosi与龋坏牙本质及其龋损生态位相关,但目前证据不足以认定其为单独的主要致龋病原菌。它更可能是乳酸驱动型龋损生态中的适应者、代谢互作伙伴以及失衡状态的指示物。
◮ 牙周炎—属层面证据较丰富
属层面证据显示:
V. denticariosi可在健康及牙周炎患者龈下菌斑中低丰度检出,但相比 V. parvula其与慢性牙周炎的特异性关联证据较弱。作为紫色复合体(purple complex)成员,它可与具核梭杆菌(F.nucleatum)共聚集,参与桥接早期与晚期定植菌,但在牙周炎活跃期其相对丰度通常下降(被红色/橙色复合体取代),故仍倾向于代表相对健康的牙周微生态成分。
不过,V. denticariosi在牙周炎中的直接证据仍然较少;它可能具备参与牙周生物膜生态的潜力,但目前尚不足以将其明确视为牙周炎相关的优势种。
◮ 种植体周围炎—丰度更高
部分研究发现,Veillonella属在种植体周围炎中可能增多,并与以下因素相关:钛颗粒、氧化应激、生物膜成熟以及厌氧微环境。其过氧化氢酶活性或可帮助其适应氧化应激。
◮ 与口臭、牙髓、根管和牙源性感染的联系
编辑
Veillonella 属可见于:
V. denticariosi 来源于龋坏牙本质,理论上可能参与深龋向牙髓感染发展的厌氧生态,但目前缺乏种水平直接证据。
此外,部分Veillonella可利用L-半胱氨酸产生硫化氢(H₂S),从而可能与口臭有关;该过程还会受pH 和乳酸水平调节。
◮ 与口腔鳞状细胞癌的潜在关系
研究发现,Veillonella 在口腔鳞状细胞癌(OSCC)发展中可能呈阶段性变化:在口腔潜在恶性病变或早期肿瘤发生阶段可能升高,而在晚期 OSCC 中常下降。其作用更像是肿瘤相关微生物群的生态调节因子,而非单一致癌菌。
OSCC发育阶段Veillonella丰度动态
编辑
doi: 10.3389/froh.2026.1740043.
可能机制包括:
Veillonella属对口腔致癌的假设机制
编辑
doi: 10.3389/froh.2026.1740043.
对于V. denticariosi而言,更稳妥的说法是:它可能参与肿瘤前或肿瘤相关的菌群失衡变化,但目前缺乏证据表明它是 OSCC 的独立致癌因子。
V.denticariosi与口腔外疾病
◮ 发育迟缓儿童V.denticariosi丰度变化
编辑
印尼儿童研究发现V. denticariosi与儿童营养状态相关:
但需强调:这并非因果证明。口腔卫生、饮食与糖摄入、家庭经济及卫生条件等因素都可能造成混杂;仍需纵向研究加以验证。因此,更合理的结论是:V. denticariosi 可能反映儿童口腔生态与营养相关状态,但其是否参与发育迟缓的病理过程尚不明确。
◮ 可能与心血管疾病、系统性炎症相关
Veillonella属还被报道与动脉粥样硬化斑块、系统性炎症等口腔外健康问题存在关联。部分研究发现 Veillonella 和 Streptococcus 可在动脉粥样硬化斑块中被检测到,提示口腔菌群可能与心血管疾病相关。
然而,对V. denticariosi来说,这类证据更弱。目前尚不能说明它直接参与口腔外疾病。更合理的理解是:如果口腔菌群失衡、牙周炎或菌血症风险增加,口腔 Veillonella 成员可能作为整体微生物网络的一部分参与系统性炎症关联,但V. denticariosi 的独立作用仍需验证。
V. denticariosi在疾病中的意义主要体现在龋病相关生态位中。它可能通过乳酸利用、生物膜共聚集、厌氧环境适应和与其他致病菌的代谢互作,参与龋病生物膜的形成和维持。
对于牙周病、牙髓根尖周病、口臭和口腔癌,其作用目前更多来自 Veillonella 属层面的推断。总体来看,V.denticariosi更可能是口腔微生态失衡的参与者和标志物,而不是单独、强致病的病原菌。
综上所述,Veillonella denticariosi(龋齿韦荣氏球菌)是一种生态位特征鲜明、但研究仍相对有限的口腔厌氧球菌。它以乳酸等短链有机酸为核心能源,通过交叉喂养与链球菌、乳杆菌等产酸菌建立共生关系,并作为潜在的桥接菌参与多物种生物膜的构建与厌氧微环境的维持。在人群分布上,它在健康成人口腔中并不常见,却与龋坏牙本质、儿童龋损及特定儿童牙面生物膜密切相关,呈现出高度依赖部位、年龄与生态条件的分布特征。
在疾病层面,V. denticariosi与龋齿的关联最为明确,但现有证据更支持其作为龋损生态位的适应者、乳酸利用者与菌群失衡的标志物,而非独立的主导致龋病原体。至于牙周炎、牙髓根尖周病、口臭、口腔鳞状细胞癌乃至儿童发育迟缓、心血管疾病等口腔外关联,目前多来自 Veillonella 属层面的推断,种水平的直接证据仍显不足。
因此,理解V. denticariosi的关键不在于简单地将其归为”致病菌”或”有益菌”,而在于将其置于动态的口腔微生态网络中加以审视——它的意义随部位、菌群结构与疾病阶段而变化。未来仍需种水平的培养实验、代谢组学、共培养模型与纵向临床研究,才能进一步厘清其在健康维持、龋病发生及菌群失衡中的具体角色,并评估其作为口腔微生态标志物或潜在干预靶点的价值。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Byun R, Carlier JP, Jacques NA, Marchandin H, Hunter N. Veillonella denticariosi sp. nov., isolated from human carious dentine. Int J Syst Evol Microbiol. 2007 Dec;57(Pt 12):2844-2848.
Zhou P, Manoil D, Belibasakis GN, Kotsakis GA. Veillonellae: Beyond Bridging Species in Oral Biofilm Ecology. Front Oral Health. 2021 Oct 29;2:774115.
Dame-Teixeira N, de Lima AKA, Do T, Stefani CM. Meta-Analysis Using NGS Data: The Veillonella Species in Dental Caries. Front Oral Health. 2021 Oct 22;2:770917.
Theodorea CF, Azzahra NA, Idrus E, Nurkolis F, Djais AA, Mashima I. The role of Veillonella species in oral carcinogenesis: is prevalence linked to oral squamous cell carcinoma? Front Oral Health. 2026 May 8;7:1740043.
Giacomini JJ, Torres-Morales J, Dewhirst FE, Borisy GG, Mark Welch JL. Site Specialization of Human Oral Veillonella Species. Microbiol Spectr. 2023 Feb 14;11(1):e0404222.
Mashima I, Liao YC, Sabharwal A, Haase EM, Nakazawa F, Scannapieco FA. Draft Genome Sequences of Four Strains of Recently Established Novel Veillonella Species Isolated from Human Oral Cavities. Genome Announc. 2018 Apr 12;6(15):e00259-18.
Mashima I, Liao YC, Lin CH, Nakazawa F, Haase EM, Kiyoura Y, Scannapieco FA. Comparative Pan-Genome Analysis of Oral Veillonella Species. Microorganisms. 2021 Aug 20;9(8):1775.
Arif N, Sheehy EC, Do T, Beighton D. Diversity of Veillonella spp. from sound and carious sites in children. J Dent Res. 2008 Mar;87(3):278-82.
Mashima I, Theodorea CF, Thaweboon B, Thaweboon S, Nakazawa F. Identification of Veillonella Species in the Tongue Biofilm by Using a Novel One-Step Polymerase Chain Reaction Method. PLoS One. 2016 Jun 21;11(6):e0157516.
Theodorea CF, Diven S, Hendrawan D, Djais AA, Bachtiar BM, Widyarman AS, Seneviratne CJ. Characterization of Oral Veillonella Species in Dental Biofilms in Healthy and Stunted Groups of Children Aged 6-7 Years in East Nusa Tenggara. Int J Environ Res Public Health. 2022 Oct 27;19(21):13998.
Mashima I, Nakazawa F. The influence of oral Veillonella species on biofilms formed by Streptococcus species. Anaerobe. 2014 Aug;28:54-61.
谷禾健康
Dialister invisus 是一种革兰氏阴性厌氧球杆菌,最早于2003年从人类口腔感染样本中发现,主要来源于牙髓、根管和牙周感染,也可存在于肠道、阴道和呼吸道。它不如典型致病菌广为人知,因此常常被忽视,但近年来研究发现,它可能参与多种疾病的发生发展。
Dialister invisus 很少或不利用糖类,主要通过代谢氨基酸和肽获取能量,仅产生微量乙酸和丙酸,部分研究还提示其可能产生乳酸。它不仅存在于口腔环境,也可能与肠道微生态相关,提示口腔菌群与肠道菌群并非完全独立,而可能通过“口腔—肠道轴”相互联系。
越来越多研究发现,Dialister invisus 与口腔感染、牙周菌群失衡,以及炎症性肠病、肥胖、骨关节炎、结直肠癌、宫颈癌、轻度认知障碍等多种疾病存在关联。它可能并非单纯的共生菌,而是在特定微生态环境下参与炎症反应、菌群失衡或疾病进展。
本文将围绕 Dialister invisus 的基本特点、分布部位及其与健康和疾病的关系展开介绍。
Dialister invisus是戴阿利斯特杆菌属(Dialister)中的一个重要物种,最早于2003年从人类口腔感染样本中发现,主要来源于牙髓、根管和牙周感染。
1
细胞形态
•形状与大小:小型球杆菌或卵圆形球菌,大小约0.2–0.4×0.3–0.7µm。常单个、成对、短链或小团块排列。
编辑
doi: 10.1099/ijs.0.02640-0.
•运动性与芽胞:未见明确鞭毛结构,非运动性,不产芽胞。
•染色特性:它的一个显著特点是:虽然属于 Firmicutes 门(厚壁菌门),但细胞壁结构为革兰氏阴性型。
•菌落形态:在严格厌氧条件下培养时,菌落特点为:极小、圆形、透明或半透明、低凸起、直径约0.5–0.7mm,有资料称常 <0.5 mm、肉眼不易观察。
这也是其命名中 “invisus” = 看不见/难以看见 的来源之一。
2
生长环境
•氧气需求:专性厌氧(严格厌氧),它偏好低氧或无氧环境,例如:深牙周袋、龈下菌斑、感染根管、坏死牙髓、肠道远端、可能的泌尿生殖道低氧环境。
•温度范围:其最适生长温度为30°C–37°C,低于25°C或高于45°C通常不生长,这与其人体定植特征相符。
3
人群中的分布
• 健康成人
在健康成人中 D.invisus 具有较特殊的“口腔-肠道双生态位”特征:
–口腔检出率较高,可>50%;
-肠道检出率中等或较低,不同队列差异大,一项中国队列中:
口腔样本检出约53.2%;
粪便样本检出约4%;
口腔和粪便共同检出约2.6%。
这提示:D.invisus在口腔较常见,而在粪便/肠道中检出率受人群、方法影响较大。
• 口腔分布
D. invisus 是人类口腔微生物组成员之一,尤其常见于:
-龈下菌斑;
-深牙周袋;
-感染根管;
-坏死牙髓
-根尖周病灶;
-第三磨牙区域牙菌斑;
-种植体周围炎相关生物膜;
在口腔中,它更多与疾病相关生态位联系紧密,而不是典型健康优势菌。
• 根管感染中的检出率较高
多篇文献显示D.invisus在感染根管中检出率较高,尤其是:
-慢性根尖周炎
-原发性根管感染
-坏死牙髓
-急性根尖脓肿
-继发性/顽固性根管感染
部分文献报道其在根管感染中的检出率可达:
约68%–81%,因此它被认为是候选牙髓/根管病原菌。
• 肠道分布
D.invisus可在肠道中检测到,可能存在三种状态:
-真实低丰度定植者;
-口腔来源、经吞咽进入肠道的过客菌;
-炎症或菌群失衡状态下扩增的机会菌。
目前研究和资料倾向认为它在健康肠道中可能是低丰度共生或过客状态;在炎症性疾病中,其意义更复杂。
• 其他人体部位
Dialister属细菌还曾在以下部位或疾病样本中检出:
-阴道微生物组;
-细菌性阴道病样本;
-输卵管炎样本;
-尿路感染样本;
-脑脓肿;
-伤口或脓性感染。
需注意,部分资料仅鉴定到 Dialister 属水平,未必均确认为D.invisus。
4
代谢能力
• 非糖发酵型:不利用或很少利用糖类,也就是说,它不是依靠葡萄糖、蔗糖等碳水化合物发酵作为主要能量来源。
• 主要营养来源:主要依靠氨基酸和肽的代谢获取能量,这使其在蛋白水解产物丰富的环境(如坏死牙髓、炎性肠道)中具有生存优势。
• 代谢产物:仅产生微量乙酸(acetate)和少量丙酸(propionate)。有研究还提到可能产生乳酸(lactate)。
• 酶活性
D. invisus常见的酶活性:
编辑
5
基因组信息
目前对 D. invisus 的基因组结构了解有限,仅 E7.25 菌株提供了部分基因组信息。
6
耐药性
D.invisus的抗菌药物敏感性资料较少,且多停留在 Dialister属水平。
• 万古霉素
大部分Dialister菌株都对万古霉素耐药。
这与其革兰阴性样细胞壁结构相符。万古霉素主要作用于革兰阳性菌细胞壁合成,对革兰阴性菌通常效果差。
• 卡那霉素与粘菌素
有研究发现D.invisus对 粘菌素 colistin 10 μg 敏感,并且Dialister菌株对卡那霉素敏感。
• 抗厌氧菌药物
从厌氧菌治疗经验推测,它可能对部分抗厌氧药物(如甲硝唑、阿莫西林/克拉维酸、克林霉素、碳青霉烯类等)敏感,但不能直接作为临床用药依据。尤其在根管和牙周感染中,治疗核心仍是:
-机械清创;
-根管预备和冲洗;
-牙周刮治和根面平整;
-控制生物膜;
-必要时结合抗菌药物。
7
与人体和其他菌群的相互作用
• 与宿主的关系:情境依赖
D.invisus不是简单的“好菌”或“坏菌”。它更像是:情境依赖型共生/机会致病菌。
在不同部位和不同生态状态下作用不同:
-健康口腔或肠道中:可能低丰度共存;
-深牙周袋或坏死根管中:可能参与炎症性混合感染;
-健康饮食背景下:可能与抗炎免疫标志物有关;
-肠道炎症背景下:可能作为口腔来源迁移菌或菌群失衡标志物。
• 与口腔菌群的互作
D.invisus常作为复杂口腔厌氧菌群的一部分出现,可能与以下细菌共同存在:
Fusobacterium nucleatum
Treponema socranskii
Treponema denticola
Tannerella forsythia
Porphyromonas gingivalis
Prevotella spp.
Selenomonas sputigena
Anaeroglobus geminatus
Dialister pneumosintes
与”红复合体”协同:常与Porphyromonas gingivalis、Tannerella forsythia、Treponema denticola等强致病菌共存,通过提供代谢底物或改变局部微环境来增强整体菌群的致病性。
早期定植者:在龋齿进展和牙髓炎初期即可出现,为后续厌氧菌(晚定植者)创造低氧、营养丰富的环境。
在牙周炎和根管感染中,它往往不是单独致病,而是参与:
-厌氧生物膜稳定
-蛋白水解生态位维持
-炎症微环境适应
-与其他厌氧菌协同造成组织破坏
• 与 Fusobacterium nucleatum 的潜在关系
F. nucleatum 是口腔生物膜中的“桥梁菌”,可连接早期和晚期定植者。D. invisus 常与 F. nucleatum同时在牙周炎或根管感染中检出,提示:
-二者可能共享低氧、蛋白丰富生态位;
-F.nucleatum 可能促进多菌种生物膜成熟;
-D.invisus 可能作为后期厌氧群落成员参与炎症维持。
注:但目前缺少直接机制实验证明二者存在特异性互利关系。
• 与宿主免疫的互作
作为革兰阴性厌氧菌,D.invisus可能通过细胞壁成分及代谢产物影响宿主免疫:
-激活先天免疫;
-促进局部炎症反应;
-与牙周袋中出血、蛋白酶活性、组织破坏相关微生态状态共现;
-通过短链脂肪酸如乙酸、丙酸影响免疫调节。
还有一项饮食-免疫介导研究分析发现:D. invisus 被认为可介导健康饮食模式与 CRP、IL-6、VEGF、脂联素、α1-抗胰蛋白酶等系统炎症/免疫指标之间的关系。
这提示它在某些健康背景下可能与抗炎或代谢稳态有关。
• 口腔-肠道轴
D. invisus 的特殊之处在于:它可能是少数能够同时出现在口腔和远端肠道的细菌之一。
可能路径包括:
-口腔中定植,随唾液吞咽进入胃肠道;
-健康肠道中多数被清除或低活性存在,当肠道屏障受损、炎症、抗生素使用、PPI使用或菌群失衡时,可能更容易检出或扩增。
Dialister invisus 是一种最初分离自感染根管和深牙周袋的厌氧菌,现有证据主要涉及三方面:口腔致病关联、健康状态下的低丰度存在,以及口腔外疾病相关性的尚不确定。
1
D.invisus与口腔疾病
口腔疾病是D.invisus证据最集中的领域。该菌于 2003 年作为新种提出,来源主要是感染根管和深牙周袋。
• 根管感染中检出率较高
编辑
影响因子:5.897
该研究发现Dialister invisus与根管感染密切相关,D. invisus 在未治疗牙的原发性根管感染中检出率为17/21,即81%。
持续性根管感染中也可检出:在根管治疗失败后的持续性根管感染中,D.invisus 检出率为 3/22,即 14%,明显低于原发性感染,但提示其可能参与难治性或持续性根管感染。
但另一项研究纳入60名根管感染患者,包括30例原发性和30例持续性根管感染,并采用改良单步 PCR 检测 D. invisus。
在原发性根管感染中,D. invisus 阳性率为 7/30(23.3%)。
在持续性根管感染中,D. invisus 阳性率为 24/30(80%)。
• 在牙周炎中检出率更高,可能与牙周炎相关
编辑
影响因子:2.926
该研究纳入 50 项临床研究,涵盖 2739 名牙周炎患者和 1747 名牙周健康者。荟萃分析显示,牙周炎患者检出 D. invisus 的可能性显著更高,约为健康者的 3.37 倍。D. invisus 因此被列为与牙周炎显著相关的 25 种细菌之一,提示其可能参与牙周炎相关菌群失调。
需要注意的是,该文分析的是不同研究中微生物检出率/患病率的差异,而非相对丰度的直接定量。因此,更准确地说,D. invisus在牙周炎中的检出率升高,并与牙周炎显著相关,但其是否具有致病作用仍需机制研究证实。
2
D.invisus在健康中的存在
编辑
影响因子:3.998
D. invisus 并非仅见于疾病的专性病原菌;健康成人口腔样本也可检出该菌,提示其可在健康口腔中低丰度潜伏,并在环境改变时竞争力增强。这与健康人体中 Dialister 丰度较低、而种植体周围炎症病灶中 D. invisus 升高的结果一致。
• 健康口腔可检出低丰度,并非疾病特异存在。
• 健康种植体中Dialister 整体比例较低。
3
D.invisus与口腔外疾病
口腔外相关证据相对更为分散,且现有研究大多停留在相关性分析层面。
① 炎症性肠病患者中D.invisus丰度更高
编辑
影响因子:11.607
研究发现,人类肠道中主要的琥珀酸消耗菌群为 Phascolarctobacterium 和 Dialister,但两者在粪便微生物组中高度互斥。
在体外实验中,研究检测了D. invisus,确认其可利用琥珀酸并将其转化为丙酸。但与 Phascolarctobacterium 相比,Dialister 的琥珀酸消耗速率较慢。
既往研究显示,炎症性肠病(IBD)患者中 Phascolarctobacterium 减少、Dialister 增加,并更倾向于呈现 Dialister 主导的琥珀酸代谢型。这可能导致肠道琥珀酸清除减慢、粪便琥珀酸水平升高,并与肠道炎症相关。
② 牙周健康但肥胖个体中D.invisus呈升高趋势
编辑
影响因子:5.241
这项研究发现,在牙周健康个体中,肥胖与龈下菌群中 Dialister invisus丰度升高有关。研究比较了瘦型与超重/肥胖受试者的龈下菌斑微生物组成,发现 D. invisus 与多种牙周病相关菌一起,在肥胖组中相对丰度更高,并可作为区分肥胖与瘦型个体的差异菌种之一。
此外,D. invisus与肥胖相关的血液代谢紊乱存在关联:其丰度与脂质相关代谢模式呈负相关。总体而言:即使在无牙周炎、牙周临床健康的人群中,肥胖也可能促进 D. invisus 等牙周病相关厌氧菌在龈下菌群中的富集,从而潜在增加肥胖者未来发生牙周病的风险。
③ 脊柱关节炎中D.invisus丰度升高
Dialister invisus 在脊柱关节炎(SpA),尤其是轴性脊柱关节炎(axSpA)患者中呈升高趋势。
编辑
该系统综述纳入 28 项研究,涵盖 1139 名 SpA 患者和 836 名对照。结果显示,在 axSpA/强直性脊柱炎相关研究中,D. invisus 在 3 项研究中一致升高,涉及 130 名病例和 141 名对照,并被列为 axSpA 中潜在有害的肠道菌。
属水平上,Dialister 也是 axSpA 中较一致升高的菌属之一,可能与疾病加重有关;既往研究还提示其与骨破坏、骨丢失、ASDAS 升高及影像学阳性 axSpA 相关。因此,推测Dialister可能参与 axSpA 的进展。
④ 结直肠癌患者中丰度升高
编辑
影响因子:3.274
有研究合并分析了 109 个 16S rRNA 肠道微生物组数据集,涵盖 46 名结直肠癌(CRC)患者和 63 名健康对照的粪便样本。
结果显示,物种水平上,D. invisus 在 CRC 病例中显著富集,并与 Prevotella copri、Methanobrevibacter smithii、Bacteroides eggerthii 等共同构成 CRC 相关升高菌群。
随机森林模型进一步表明,D. invisus 是区分 CRC 与健康对照的重要预测菌种之一,并被纳入与临床表型/疾病相关的潜在微生物标志物集合。CRC 相关菌群失衡可能通过影响 NF-κB、TLR、细胞因子等炎症和免疫通路参与肿瘤发生,但相关机制主要基于预测分析。
注:但该研究为基于公开数据的关联性分析,不能证明D.invisus直接促进结直肠癌发生。
⑤ D.invisus与HPV感染患者宫颈癌的风险升高有关
编辑
影响因子:2.74
Dialister invisus 与高危 HPV 感染女性发生高级别宫颈病变或宫颈癌的风险升高有关。
该研究比较了正常、宫颈上皮内瘤变(CIN)和宫颈癌女性的阴道微生物群,发现 CIN 和宫颈癌患者菌群多样性升高、Lactobacillus crispatus 明显减少且厌氧菌增多。
D. invisus 的检出与 CIN 2/3 或宫颈癌风险显著相关,既往研究也显示,D. invisus 这种革兰阴性球杆菌与细胞学正常女性一年内新发 HPV 型别感染相关。
因此,D. invisus 可能是 HPV 相关宫颈癌变过程中阴道菌群失衡的相关厌氧菌之一。
⑥ D.invisus在轻度认知障碍患者中丰度升高
一项研究比较了 60 名肥胖、以非裔美国女性为主的老年人肠道菌群,包括轻度认知障碍(MCI)患者和认知正常对照。
结果显示,D. invisus 在 MCI 组中显著升高。调整久坐时间、教育水平、相关用药、抗炎药使用和舒张压等因素后,D. invisus 仍为 MCI 组升高的 ASV 之一。
进一步纳入系统性炎症指标 hs-CRP 后,其与 MCI 的关联不再显著,提示这种关联可能部分受炎症通路影响。研究人员认为,D. invisus 更常见于口腔微生物组和牙周病研究,粪便中升高可能反映口腔来源或口腔菌群状态,并间接关联口腔健康、炎症和认知功能下降。
D. invisus可能通过系统性炎症与认知受损相关;但该研究为病例对照研究,不能证明D.invisus直接导致认知下降,其来源和作用机制仍需进一步验证。
D.invisus不是简单的“好菌”或“坏菌”。它更像是:情境依赖型共生/机会致病菌。是藏在口腔和肠道之间的一个“隐形变量”。它虽然不常被大众关注,但可能连接着口腔健康、肠道微生态、免疫炎症和多种慢性疾病。
目前尚无直接证据说明如何专门降低Dialister invisus。更可行的策略是通过规范口腔卫生与饮食、使用广谱漱口剂、益生菌/益生元、草本抗生物膜制剂,以及噬菌体、口腔微生物移植等前沿手段,整体改善口腔微生态失衡,从而间接抑制 Dialister 属等厌氧机会致病菌。临床上,更建议基于口腔微生物检测,在牙周专科医生指导下制定个体化微生态干预方案,而非仅针对单一菌种。
未来如果能进一步明确它在人体内的作用机制,可能为疾病风险评估、微生态干预以及精准健康管理提供新的思路。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Downes J, Munson M, Wade WG. Dialister invisus sp. nov., isolated from the human oral cavity. Int J Syst Evol Microbiol. 2003 Nov;53(Pt 6):1937-40.
Anthamatten L, von Bieberstein PR, Menzi C, Zünd JN, Lacroix C, de Wouters T, Leventhal GE. Stratification of human gut microbiomes by succinotype is associated with inflammatory bowel disease status. Microbiome. 2024 Sep 30;12(1):186.
Khocht A, Paster B, Lenoir L, Irani C, Fraser G. Metabolomic profiles of obesity and subgingival microbiome in periodontally healthy individuals: A cross-sectional study. J Clin Periodontol. 2023 Nov;50(11):1455-1466.
Antezack A, Etchecopar-Etchart D, La Scola B, Monnet-Corti V. New putative periodontopathogens and periodontal health-associated species: A systematic review and meta-analysis. J Periodontal Res. 2023 Oct;58(5):893-906.
Haque S, Bantun F, Jalal NA, Faidah H, Babalghith AO, Alobaidy MA, Aldairi AF, Ahmad F. Gut microbiota alterations and their association with tumorigenic pathways in colorectal cancer: insights from a pooled analysis of 109 microbiome datasets. Gut Pathog. 2025 Oct 21;17(1):82.
Wang L, Wang Y, Zhang P, Song C, Pan F, Li G, Peng L, Yang Y, Wei Z, Huang F. Gut microbiota changes in patients with spondyloarthritis: A systematic review. Semin Arthritis Rheum. 2022 Feb;52:151925.
Siqueira JF Jr, Rôças IN. Uncultivated phylotypes and newly named species associated with primary and persistent endodontic infections. J Clin Microbiol. 2005 Jul;43(7):3314-9.
Naginyte M, Do T, Meade J, Devine DA, Marsh PD. Enrichment of periodontal pathogens from the biofilms of healthy adults. Sci Rep. 2019 Apr 2;9(1):5491.
谷禾健康
你是否有过这样的经历:明明没有剧烈运动,却总是感到莫名的疲惫;或者明明控制了饮食,体重却依然居高不下,体检报告上的血糖、血脂指标也总是亮起红灯?我们习惯将这些问题归咎于“吃多了”或“动少了”,却往往忽视了一个潜伏在身体内部、肉眼不可见的“隐形杀手”——脂多糖(LPS)。
脂多糖并非外来入侵的毒素,而是我们肠道中数以万亿计细菌的细胞壁成分。在正常情况下,它安分守己地待在肠道内,甚至对免疫系统有益。然而,当肠道屏障受损或饮食结构失衡时,这些本不该进入血液的分子便会“越狱”,引发一场悄无声息却破坏力巨大的全身性慢性炎症。
这种持续存在的低水平炎症,被认为是代谢综合征、2型糖尿病、非酒精性脂肪性肝病以及动脉粥样硬化等多种慢性疾病的重要共同发病基础。脂多糖(LPS)在这一过程中发挥关键作用,可诱导并放大炎症反应,从而促进相关疾病的发生与发展。
那么,脂多糖是如何由肠道内的正常成分转变为影响机体健康的重要因素的?机体又可以通过哪些机制对其进行调控,以维持生理稳态?本文将从机制层面系统分析LPS的作用路径及其对健康的影响。
♥
▸ 脂多糖的定义与特性
脂多糖(Lipopolysaccharide,简称LPS)是革兰氏阴性菌细胞壁外膜特有的结构大分子复合物,由三个功能区域共价连接组成的异源多糖-脂质复合物,三个区域分别承担不同生理功能。
革兰氏阴性菌膜由两层细菌膜组成,分别是外层和内层膜,外膜富含脂多糖(LPS)。
脂多糖(LPS)是两性分子,类脂A部分疏水,多糖部分亲水,所以LPS能够在细菌表面形成稳定的双亲结构,维持外膜完整性,同时作为屏障抵抗抗菌物质进入细菌体内。
↘ 脂多糖与内毒素的关系
脂多糖之所以被称为”内毒素”,是因为它是革兰氏阴性菌细胞外膜的重要结构成分,通常不以游离形式主动分泌。在细菌死亡或裂解时会大量释放出来,这一特点与由活菌主动分泌的“外毒素”形成鲜明对比,因此得名“内毒素”。
↘ 内毒素与外毒素的主要区别
编辑
需要注意的是,在感染过程中,细菌不断生长和死亡,会持续释放脂多糖;而在严重感染或抗生素治疗后,大量细菌同步裂解,可能在短时间内释放大量LPS,从而加重炎症反应,严重时可引发内毒素相关的全身炎症反应综合征。
▸ 脂多糖的分子结构
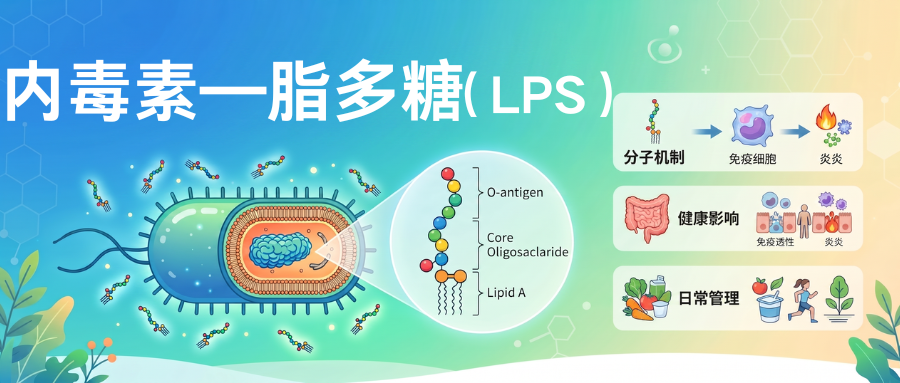
LPS分子从内到外分为三个部分:最内层是类脂A,中间是核心多糖,最外层是O抗原(O特异性多糖),三个部分共价连接形成完整LPS分子。
编辑
doi.org/10.3389/fimmu.2025.1588129
★ 每个部分结构和功能都不同:
•类脂A:嵌入外膜磷脂双层,是LPS的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构;
•核心多糖:连接类脂A和O抗原,结构相对保守,是革兰氏阴性菌共同抗原成分;
•O抗原:最外层,是多糖重复单位,结构变异性最大,决定细菌血清型特异性,是细菌逃避免疫识别的重要方式。
编辑
doi.org/10.5217/IR.2014.12.2.90
这种三层结构设计是革兰氏阴性菌长期进化结果,它既保护细菌本身,也决定了它和人体免疫系统相互作用方式,类脂A是毒性中心,O抗原是免疫逃逸,这种结构对应功能的关系便于更好理解它对健康影响。
★ 脂多糖的结构多样性决定其生物活性差异
不同革兰氏阴性菌的脂多糖(LPS)在结构上存在显著差异,尤其是类脂A部分在酰基链数量、长度以及磷酸化修饰上的变化,会直接影响其免疫激活能力。因此,并非所有革兰氏阴性菌的LPS都具有相同毒性,共生菌来源的LPS通常显著低于典型致病菌。
很多人将“革兰氏阴性菌”与“强内毒素”直接等同,但实际上,不同细菌来源的LPS在毒性上差异很大。理解这种差异,有助于我们更准确地区分共生菌与致病菌的生物学影响。
↘ 类脂A:脂多糖的毒性中心和生物活性中心
类脂A嵌入外膜磷脂双层,是脂多糖的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构。LPS的大部分生物学活性,包括毒性和免疫刺激性,都由类脂A部分决定,类脂A结构变异直接改变LPS毒性强弱,六酰化饱和类脂A毒性最强,酰基链减少毒性显著下降。
编辑
doi.org/10.5217/IR.2014.12.2.90
不同来源的类脂A结构与毒性差异:
•致病菌(如大肠杆菌、沙门氏菌):类脂A多为六酰化,且具有完整的双磷酸结构,与TLR4-MD2亲和力高,能够强烈激活免疫反应。
•肠道共生菌(如拟杆菌属):类脂A通常为五酰化或四酰化,并伴随去磷酸化或其他修饰,与受体结合能力较弱,炎症活性显著降低(在部分实验中可低几个数量级)。
•环境调控型细菌(如耶尔森氏菌):其类脂A结构可随温度变化而调整,在环境温度下多为低酰化形式,而在37℃宿主体内转为高酰化形式,从而增强毒性。
编辑
doi: 10.1128/mSystems.00046-17.
如上图所示,拟杆菌门(Bacteroidetes)是人类肠道微生物群中脂多糖(LPS)生物合成能力的主要贡献者。
↘ 核心多糖:连接类脂A和O抗原的保守结构
核心多糖位于类脂A和O抗原之间,主要作用是连接两个部分,它的结构相对保守,在同一属的不同细菌之间结构大多相似,含有特殊的糖分子庚糖和KDO。
核心多糖可以分为两个部分:
•内核心:靠近类脂A,含有特殊的糖分子:3-脱氧-D-甘露-辛酮糖酸(简称KDO)和L-甘油-D-甘露庚糖,这两种糖在其他地方很少见,是LPS核心多糖特征性成分。内核心结构非常保守,不同革兰氏阴性菌之间变化很小。
•外核心:连接内核心和O抗原,由己糖组成,结构比内核心变异大一些,但仍然比O抗原保守很多,同一属细菌外核心结构相似。
核心多糖带有多个负电荷,能够结合二价阳离子比如镁离子钙离子,这些阳离子中和负电荷,稳定LPS在细菌外膜的结构,如果去掉阳离子,LPS结构将变得不稳定,外膜通透性增加,细菌容易被抗菌物质杀死。
↘ O抗原:决定细菌特异性的高度变异部分
O抗原是LPS分子最外层的多糖重复单位,是LPS中变异性最大的部分,不同血清型革兰氏阴性菌O抗原结构不同,这种高度变异是细菌逃避免疫识别的重要进化策略。O抗原高度变异直接关系到细菌致病性和免疫识别,但是O抗原本身基本没有毒性,主要影响细菌免疫原性和致病性,不直接影响LPS毒性强弱。
O抗原由多个相同的寡糖重复单位聚合而成,每个重复单位通常含有2-6个糖分子,不同细菌重复单位的糖组成、排列顺序、连接方式都可以不同,所以变异非常大,理论上可以产生成千上万种不同O抗原结构。
实例:E. coli O157:H7(常见的致病性肠出血性大肠杆菌)与E. coli O26、O111等其他血清型的区别,本质上就是O抗原多糖重复单位的结构不同。有的重复单位含有不同种类的糖(葡萄糖、半乳糖等),有的糖连接方式不同(α-1,3还是β-1,4),排列顺序也不同。因此针对O157的抗体一般难以有效识别O26等其他血清型,但在个别情况下可能存在有限的交叉反应。
▸ 光滑型脂多糖和粗糙型脂多糖的差异
完整脂多糖(LPS)含有O抗原叫做光滑型LPS,缺失O抗原只剩下类脂A和核心多糖叫做粗糙型LPS,也叫脂寡糖(LOS),两者在稳定性、免疫原性和致病性上都有显著差异。
编辑
编辑
doi.org/10.3390/ijms24098395
LPS(脂多糖)结构示意图:图中亮红色的LPS锚定在革兰氏阴性(G-)细菌的外膜上。根据O抗原和核心区(core)的长度,可将LPS分为光滑型(S)、半粗糙型(SR)、粗糙型(R)和深度粗糙型(DR)。从LPS最外层到最内侧疏水部分,其结构变异性逐渐降低。
♥
▸ 脂多糖对革兰氏阴性菌生存的影响
脂多糖(LPS)不仅仅是致病因子,它对革兰氏阴性菌自身生存具有非常重要的生理功能,维持外膜结构完整性,抵抗抗菌物质入侵,保护细菌生存,虽然部分菌株即使缺失或改变LPS结构仍可存活,但是其生理功能和适应性会显著受损。
脂多糖对革兰氏阴性菌的主要生理功能:
①维持外膜结构完整性:脂多糖是革兰氏阴性菌外膜主要成分,占外膜干重三分之一以上,LPS分子通过二价阳离子交联形成稳定网状结构,维持外膜通透性和结构完整性,如果缺失LPS,外膜结构破坏,细菌存活能力下降。
②形成通透屏障抵抗抗菌物质:LPS外层亲水内层疏水,形成选择性通透屏障,能够阻挡疏水抗菌物质、胆汁盐、补体、溶菌酶进入细菌体内,保护细菌免受宿主防御物质和抗生素攻击,增加细菌耐药性。
③抵抗宿主免疫攻击:O抗原能够保护细菌不被补体激活和吞噬细胞吞噬,帮助细菌逃避免疫清除,增加细菌致病性,有O抗原的菌株更容易引起全身性感染。
④介导细菌粘附:LPS能够介导细菌粘附到宿主黏膜上皮细胞,帮助细菌定植,这是感染第一步,所以LPS对细菌定植也很重要。
因为脂多糖对细菌生存这么重要,所以几乎所有革兰氏阴性菌都必须合成LPS,只有极少数例外,比如某些衣原体可以缺失。
▸ 肠道中的脂多糖与人体屏障系统
据估计,人类结肠中含有约10¹³–10¹⁴个细菌,总生物量约为数百克(通常约0.2–0.5 kg)。这些细菌在生命活动过程中可产生脂多糖(LPS)。研究表明,以大肠杆菌为代表的革兰氏阴性菌,其单个细胞所含LPS约为几飞克至几十飞克(约2–50fg)。基于此进行粗略估算,肠道中LPS的总量大致处于几十毫克至数百毫克的范围,具体取决于菌群组成及生理状态。
然而,静脉注射LPS的致死剂量仅为1–2微克。也就是说,肠道内的LPS总量,可能是致死剂量的千倍甚至百万倍。那么为什么我们不会被”毒死”?答案在于——人体的屏障系统。
↘ 肠道屏障:把”危险”关在门外
人体的上皮组织(比如肠道内壁)在进化过程中,形成了极其高效的防御结构,能够将有害物质隔离在外。
在正常情况下,肠道细菌及其产生的LPS主要存在于肠腔内部,它们被粘液层和上皮细胞牢牢阻挡,不会接触到体内的深层组织。
研究发现,只要这些细菌停留在肠腔一侧,就不会对肠道细胞造成伤害。真正的危险发生在当LPS接触到上皮细胞”背面”(基底侧)时,毒性才会显现。
↘ 肠道屏障破坏的风险因素
当肠道屏障被破坏时,情况就会发生改变:细菌可能穿过粘液层,从细胞之间的缝隙渗透,甚至直接穿过细胞进入更深层组织。一些致病菌本身就具备”入侵能力”,可以主动突破防线。一旦细菌或大量LPS进入血液,免疫系统会迅速响应,但如果负荷过高,可能引发严重后果,比如全身炎症反应、败血症甚至败血性休克。
以下人群风险更高:
-新生儿(免疫系统尚未成熟);
-老年人或重症患者;
-免疫功能受损的人群;
-长期使用导尿管等侵入性器械者;
-肠道存在炎症、损伤或肿瘤的人。
▸ 肠道暴露导致脂多糖转移到循环中
在正常生理条件下,血浆中LPS水平极低。这是因为健康的肠道限制了LPS分子进入血液的途径。尽管持续暴露于LPS,肠细胞和结肠细胞对这些刺激表现出低反应状态,部分原因在于这些细胞中Toll样受体4(TLR4)表达较低。这种肠道耐受机制最大限度地减少了肠腔内的炎症反应。
此外,肠道微生物群中LPS的暴露在免疫系统的发育和成熟中起着关键作用,训练肠道相关淋巴组织(GALT)中的调控T细胞。个体的LPS谱系取决于肠道微生物群的组成,而肠道微生物群的组成因地理和生活方式等因素而有所变化。
▸ 脂多糖在肠道中”常态存在”的生理意义
很多人一听说脂多糖(LPS)有害,就想把肠道里的LPS彻底清除。实际上,这既不现实,也没有必要。相反,维持生理范围内的LPS暴露,对健康是有意义的。
在健康婴儿、成年人和老年人肠道菌群中,革兰氏阴性菌占有一定比例(如拟杆菌门)。这些细菌在更新过程中会不断死亡、裂解,从而释放LPS到肠腔中。因此,肠道内持续存在低水平LPS是一种正常的生理现象,而不是异常状态。生理水平的脂多糖具有以下作用:
•促进免疫系统正常发育:无菌动物由于缺乏包括LPS在内的微生物刺激,免疫系统发育不成熟,免疫应答能力不足,更容易出现过敏和自身免疫问题。适度的LPS等刺激有助于免疫系统建立“耐受”和”分辨能力”,这是”卫生假说”的重要机制基础之一。
•维持先天免疫的基础警戒状态:低水平的微生物信号可以让机体免疫系统保持”准备状态”。如果完全缺乏这类刺激,机体在真正遇到病原体时,可能反应迟缓,反而更容易感染。
•有助于睡眠:2024年发表的一项研究表明当LPS注入门静脉循环时,会引起睡眠增加和体温升高。门静脉循环负责将来自胃、小肠和大肠(这些器官中存在肠道微生物群)的血液输送到肝脏。像LPS这样的微生物分子可以通过“转位”过程进入门静脉,从而进入宿主体内环境。
编辑
事实上,在健康的人类、大鼠和小鼠体内,脂多糖天然存在于门静脉和全身循环血液中,是一种来源于原核生物的生理性血浆成分。
研究进一步暗示日常生活中的一些刺激会进一步促进LPS的转位,从而提高其在血液中的水平。例如,一顿高脂餐(如三片涂有50克黄油的吐司)可使人体血浆LPS水平升高约50%。此外,少量饮酒、急性或慢性睡眠不足以及轻度心理压力等常见情况,也都会增加循环中的LPS水平。
!
关键观点
问题不在”有没有”,而在”是否过量”。真正有害的是脂多糖异常升高并进入循环(如肠屏障受损导致的”内毒素血症”),这会诱导慢性低度炎症,进而与代谢性疾病等相关。因此,我们关注的重点不是”全部消灭LPS”,而是避免其异常升高和大量入血。
♥
▸ 肠道是人体内脂多糖的主要来源
在健康成年人中,肠道是体内LPS(脂多糖)最主要的产生和储存场所。健康成年人肠道内约有10¹³–10¹⁴数量级的微生物,其中约20%–40%为革兰氏阴性菌(以拟杆菌门为主),这些细菌在持续更新过程中不断裂解并释放LPS。
相比之下,口腔(如牙周炎时)虽也可产生LPS但总体规模较小,呼吸道和皮肤等部位菌量更低,对全身LPS贡献有限,但是注意在严重局部感染或全身感染时,这些部位也可能成为重要来源。
▸ 关键分界:是否进入循环
一个非常重要但常被忽略的点是:肠道中LPS很多≠血液中LPS一定高。
↘ 在健康状态下:
•肠道屏障(上皮细胞+紧密连接+黏液层+IgA)有效阻挡LPS进入体内;
•只有极少量LPS可进入循环;
•血浆LPS通常处于低水平(常见报道为pg/ml级别);
•这个水平属于生理暴露,不会引发系统性炎症。
↘ 何时变成问题?当出现以下情况时:
•肠道屏障受损(如”肠漏”);
•肠道菌群失衡(如革兰阴性菌过度增殖);
•高脂饮食促进LPS转运(经乳糜微粒)
就会导致进入循环的LPS增加(而不是肠道LPS本身增加才是关键),这就是所谓的代谢性内毒素血症,其特点是:
•血中LPS轻度但持续升高;
•激活TLR4等炎症通路;
•诱导慢性低度炎症;
•并与胰岛素抵抗、肥胖、非酒精性脂肪肝、动脉粥样硬化相关。
代谢性内毒素血症的经典模型认为,LPS可能进入全身循环并促进慢性炎症。该经典模型指出:
(1) 西式饮食可能增加产生LPS的细菌数量并增加脂肪吸收。
(2) LPS可在局部发挥作用并诱导炎症反应,也可通过刷状缘的移位转运以及在乳糜微粒内进入全身循环。
(3) 主要来源于肝脏的LBP与循环中LPS的脂质A部分结合。
▸ 脂多糖进入血液循环的主要途径
LPS从肠道进入血液循环主要通过两条途径:一是肠道通透性增加(肠漏)导致经细胞间隙进入循环,二是在脂肪吸收过程中结合乳糜微粒,经淋巴系统进入血液。这两条途径共同影响体内LPS的总体水平。
↘ 第一条途径:肠漏(细胞间隙通透增加)
当肠道上皮紧密连接受损,细胞间隙通透性增加,LPS可以从肠腔进入黏膜下组织,并进一步进入门静脉循环。这一过程不依赖脂肪摄入,而主要取决于肠屏障完整性。长期通透性升高,是循环LPS持续升高的重要原因之一。
↘ 第二条途径:乳糜微粒转运
LPS具有一定亲脂性。在摄入脂肪后,肠道形成乳糜微粒以吸收和运输脂类物质,部分LPS可结合在乳糜微粒上,随其进入淋巴系统,最终进入体循环。这一过程与脂肪摄入量相关:脂肪摄入越多,乳糜微粒生成越多,LPS转运量也可能相应增加。这也是高脂餐后出现”餐后内毒素血症“的一个重要机制。
这两条途径通常同时存在:肠道通透性决定基础LPS水平,而餐后乳糜微粒可造成短时升高,两者叠加,可能导致整体水平上移。
★ 短时过量脂肪摄入可能导致脂多糖过多的危害
当长期高脂摄入、频繁产生大量乳糜微粒,或肝脏清除能力下降时,可能出现LPS清除不及、循环水平升高的情况,从而与慢性低度炎症相关。
因此,并不需要避免脂肪摄入本身,而是应关注总量与分配:避免单次摄入过多脂肪,有助于降低一次性LPS负荷。只要控制每餐脂肪量,不要一次摄入太多脂肪,减少单次转运LPS量,就不会对健康造成危害,完全禁止脂肪摄入也不利于健康,关键是量和频率。
这个也解释了为什么中国人说“饱食伤身”,一次吃太多脂肪不仅热量过剩,还带来大量LPS进入循环,导致一次炎症峰,反复多次就是慢性炎症,所以吃七八分饱不仅减少热量,也减少LPS,对健康更有利。
♥
▸ 脂多糖的半衰期与清除动力学
LPS在人体内的半衰期取决于其浓度和人体解毒能力。生理低剂量LPS进入循环后,半衰期大约是几分钟到十几分钟,能够被肝脏快速清除,但是高剂量LPS超过肝脏清除能力,半衰期显著延长,能够在循环中停留几个小时,持续激活炎症。
了解半衰期能够帮助我们理解为什么低剂量持续暴露比一次性高剂量更有害,为什么慢性持续LPS升高导致慢性病。
▸ 肝脏:清除循环LPS的主要器官
进入门静脉的脂多糖约有80–90%在肝脏被清除,主要由Kupffer细胞介导,肝脏因此成为清除循环LPS的关键器官。
正常肝功能有助于维持低水平LPS,而功能受损时清除能力下降,易导致其升高。除直接吞噬外,LPS还可与LDL、HDL等血浆脂蛋白结合,并被肝细胞和Kupffer细胞摄取,从而进一步促进清除。
编辑
↘ 肝脏功能能够影响脂多糖的清除能力
因此,肝脏构成防止LPS进入体循环的重要屏障。肝功能正常,清除能力强,能够快速清除LPS,肝功能下降,清除能力下降,相同剂量LPS半衰期延长,炎症更明显,所以肝功能不好的人更容易发生内毒素血症。
编辑
▸ 肠道碱性磷酸酶对LPS的解毒作用
肠道上皮分泌的碱性磷酸酶(intestinal alkaline phosphatase, IAP)可通过去除LPS脂质A上的磷酸基团,将其转化为低毒形式,显著降低其激活TLR4-MD2受体的能力,从而减弱炎症反应。
↘ 碱性磷酸酶能够减弱脂多糖导致的炎症反应
这一过程发生于LPS进入体内之前,是肠道局部解毒的重要机制和防止系统性炎症的第一道屏障。IAP由小肠上皮刷状缘表达,直接与肠腔内LPS接触;其去磷酸化作用可使LPS炎症活性降低数十至数百倍。
动物研究表明,缺失IAP会增加对LPS的敏感性并加重炎症反应。IAP为含锌酶,锌对其结构稳定和催化活性至关重要,缺锌可降低其功能并增加活性LPS负荷。部分研究还提示,高脂饮食可能抑制IAP表达或活性,而低脂或特定膳食模式有助于维持其功能,但相关结论尚不一致。
▸ 低密度脂蛋白与脂多糖的相互作用
脂多糖(LPS)进入循环后,一部分游离存在,另一部分与低密度脂蛋白(LDL)结合。结合后,LPS的疏水结构被包埋于LDL颗粒内,减少与免疫细胞表面TLR4受体的接触,从而降低其炎症活性,这是一种机体的保护性机制。
↘ LDL与LPS的结合具有双重效应
然而,携带LPS的LDL更易被巨噬细胞通过清道夫受体摄取,促使其转化为富含胆固醇的泡沫细胞,进而在血管壁沉积形成脂纹,推动动脉粥样硬化的发生与发展。
因此,LDL与LPS的结合具有双重效应:既可降低游离LPS的炎症活性,又促进泡沫细胞形成和动脉粥样硬化进展。当LPS与LDL同时升高时,心血管风险显著增加,且两者具有协同放大效应。循环LPS水平升高会增强LDL的致动脉粥样硬化作用,这是其促进心血管疾病的重要机制之一。
▸ LPS清除的多器官协作(肝-脾-肾)
除肝脏外,脾脏和肾脏亦参与循环LPS的清除与代谢:肝脏为主要清除器官,脾脏提供辅助清除,肾脏负责排泄降解产物。整体上,网状内皮系统(单核-巨噬细胞系统)协同维持LPS稳态。
↘ 肝脏主要清除、脾脏辅助清除
进入循环的LPS大多由肝脏Kupffer细胞清除,其余部分可被脾脏巨噬细胞摄取。肾脏对完整LPS的直接清除有限,主要排泄其降解后的小分子片段,参与代谢末端处理。
LPS清除依赖单核-巨噬细胞系统的吞噬功能;当疾病、炎症或药物导致该系统功能下降时,清除效率降低、半衰期延长,循环水平升高并加重炎症反应。
总体而言,LPS清除体现多器官协同的分层防御:肝脏为核心屏障,脾脏补充清除,肾脏负责排泄。该体系功能正常时可有效控制LPS水平;若输入增加(如肠屏障受损或饮食因素)且清除能力下降(如肝功能或免疫功能减弱)并存,则可能突破防线,导致慢性低水平内毒素血症。
♥
▸ 肠道菌群失调
当肠道菌群失调时,菌群结构和代谢功能发生改变,可能导致脂多糖负荷及其炎症活性升高。肠腔中LPS水平上升,同时在饮食和屏障因素作用下进入循环的LPS增加。因此,通过改善菌群结构与代谢环境,可以从源头降低高炎症活性的LPS负荷。
健康成年人肠道中本就富含革兰氏阴性菌(如拟杆菌门)。但菌群失调(如高脂、低纤维饮食)会改变其结构,使部分菌群(尤其肠杆菌科)增加,同时短链脂肪酸等代谢产物减少,从而共同影响LPS相关效应。
不同来源的LPS免疫活性差异显著:拟杆菌来源LPS炎症活性较低,而大肠杆菌来源则更易诱导炎症。因此,关键不在于阴性菌数量多少,而在于高炎症活性LPS的比例是否上升。
↘ 在吸收方面,LPS进入循环主要通过:
•与脂质结合,经乳糜微粒转运(高脂饮食关键机制);
•肠屏障功能改变(紧密连接受损)。
因此,高脂低纤维饮食的作用是双重的:一方面改变菌群结构,另一方面显著促进LPS进入血液循环,共同提高循环LPS水平。
↘ 膳食纤维则通过不同路径发挥作用:
•促进产短链脂肪酸菌生长(如产丁酸菌);
•增强肠道屏障功能;
•调节菌群整体生态。
从而降低脂多糖相关炎症负荷。
这一机制把”菌群失调”和”慢性炎症”连接起来,但更准确的路径应理解为:
菌群失调 → LPS结构与负荷改变+代谢环境改变 → LPS更容易进入循环 → 诱导低度慢性炎症 → 胰岛素抵抗、脂肪肝、动脉硬化等问题 → 参与多种慢性疾病发生发展。
这里的关键,不是单一指标(比如阴性菌比例),而是菌群整体生态与宿主相互作用。所以,调节肠道菌群的核心,不是简单”降低革兰氏阴性菌”,而是恢复菌群结构与功能的平衡,从而降低高炎症活性的LPS负荷。
▸ 小肠细菌过度生长
正常情况下,小肠受胃酸和蠕动影响,细菌浓度远低于结肠(约10¹¹–10¹² CFU/ml的万分之一),因此LPS水平较低,即使全部吸收,总量也有限。
↘ 小肠细菌过度生长使脂多糖水平显著升高
发生小肠细菌过度生长(SIBO)时,小肠细菌增至10⁵–10⁸ CFU/ml,且多为革兰氏阴性菌,使腔内LPS浓度升高数十至上百倍。由于小肠吸收面积大、通透性高,更多LPS进入门静脉循环,导致循环水平升高。同时,SIBO还可损伤黏膜、破坏紧密连接,进一步增强LPS吸收,形成叠加效应。因此,不明原因的慢性LPS升高应考虑SIBO。
LPS的影响不仅取决于“数量”,还取决于“产生部位”:结肠产量高但吸收受限,小肠产量较低却更易入血。研究显示,SIBO患者循环LPS显著升高,根除后可下降并伴随症状改善,提示其为重要来源之一。这也解释了SIBO与多种肠外疾病的关联,即通过增加LPS吸收诱发全身慢性炎症。
▸ 牙周炎:被低估的”持续性LPS输入源”
牙周炎中,牙周袋内聚集大量革兰氏阴性厌氧菌(如牙龈卟啉单胞菌),持续释放脂多糖。在局部炎症和血管通透性增加的情况下,这些LPS可以进入血液循环,成为全身LPS负荷的长期来源之一。
很多人把牙周炎当作”口腔问题”,但忽略了一点:牙龈是一个高度血管化、长期暴露炎症的组织,这意味着,口腔里的炎症信号,是可以”进入全身”的。
↘ 牙周炎的核心环境是牙周袋:
•厌氧环境;
•大量革兰氏阴性菌;
•持续细菌更新与裂解释放脂多糖。
▸ 脂多糖与肠道屏障损伤的正反馈循环
脂多糖不仅可通过肠道进入循环,还可反过来破坏肠道屏障结构,增加通透性(”肠漏”),从而进一步促进LPS吸收,形成正反馈循环。
研究表明脂多糖可激活肠上皮细胞中的NF-κB通路,诱导炎症因子释放。这些炎症信号可导致紧密连接蛋白(如occludin、ZO-1)发生内吞和降解,从而破坏紧密连接结构。
结果是肠道通透性增加,使更多LPS从肠腔进入门静脉及全身循环。升高的LPS又进一步加重屏障损伤,形成循环:
LPS升高 → 屏障受损 → 通透性增加 → LPS吸收增加 → LPS进一步升高。
这一循环可持续放大低度慢性炎症状态。这表明一旦肠道屏障受损,单一干预往往难以逆转进程;同时降低LPS来源与修复屏障结构,可能更有助于打破这一循环。
▸ 其他升高脂多糖水平的风险因素
↘ 时间维度:停留越久→吸收越多(便秘)
便秘本质是”肠道内容物滞留”。停留时间延长→细菌裂解释放更多LPS + 与肠壁接触更久→吸收增加。同时伴随菌群失衡→进一步增加LPS来源。
结果:脂多糖”暴露时间+浓度”双升高。
↘ 屏障维度:肠道越”漏”→进入越多(压力/睡眠不足)
慢性压力通过皮质醇破坏紧密连接→肠道通透性增加。原本被阻挡的LPS更容易进入血液。同时压力还会改变菌群→增加LPS产生。
结果:LPS”通行能力”增强。
↘ 储存维度:储得越多→释放越久(肥胖)
肥胖不是单纯”多脂肪”,而是一个LPS放大系统:脂肪组织储存LPS并持续释放;菌群失调→产生更多LPS;肠道屏障变差→吸收更多LPS。
编辑
结果:LPS”长期维持在高水平”。
↘ 生活方式和饮食因素
多种生活方式和饮食因素通过”增加LPS产生+增加LPS吸收“两条路径,提高体内LPS水平:
•高脂饮食:一方面促进乳糜微粒把LPS带入血液,另一方面改变菌群增加革兰阴性菌→LPS显著升高。
•过量饮酒:破坏肠道屏障(肠漏)+ 改变菌群→更多LPS进入血液,加重肝脏炎症。
•吸烟:影响口腔和肠道菌群+ 破坏屏障→多来源增加LPS。
•膳食纤维不足:有益菌减少、短链脂肪酸下降→菌群失衡+ 屏障变差→LPS升高。
•长期抗生素:杀死有益菌、促使阴性菌占优势+ 损伤屏障→LPS增加。
♥
▸ LPS与TLR4的识别与信号传导
LPS通过与细胞膜上的Toll样受体4(TLR4)复合物结合,激活先天免疫细胞,其生物学效应由此启动。作为典型的病原体相关分子模式(PAMP),LPS被TLR4这一模式识别受体特异性识别。
↘ 脂多糖的识别过程需要多种蛋白质协同作用:
•LPS结合蛋白(LBP):首先结合循环中的游离LPS,从聚集体中提取LPS分子,并将其运输至CD14;
•CD14:将LPS转移至TLR4-MD2复合物;
•TLR4-MD2复合物:MD2蛋白结合LPS的脂肪酸A部分。结合后,MD2发生构象变化,导致TLR4二聚化并启动下游信号转导。
▸ TLR4多态性影响LPS敏感性与疾病风险
TLR4基因多态性(如Asp299Gly、Thr399Ile)可改变受体结构,降低其与LPS的结合亲和力和敏感性,从而减弱炎症反应,并影响慢性疾病的易感性。
因此,在相同脂多糖水平下,不同个体的炎症程度和疾病风险可存在显著差异。携带这些变异的个体炎症反应较低,动脉粥样硬化风险可能下降,但对革兰氏阴性菌感染的易感性及严重脓毒症风险增加,体现出权衡效应。相反,无变异者对LPS更敏感,更易发生强烈炎症反应及相关慢性疾病,需要更积极地控制LPS水平。
除上述多态性外,其他遗传变异亦参与调控LPS敏感性,共同决定个体差异。这也反映了遗传与环境的相互作用:环境决定暴露水平,遗传决定反应强度,两者共同影响疾病风险。
编辑
doi.org/10.3390/ijms24098395
▸ 脂多糖的免疫识别与炎症激活
↘ 识别与递呈(胞外阶段)
LPS在循环中先由脂多糖结合蛋白(LBP)结合并单体化,随后转移至CD14(mCD14或sCD14),再递交给TLR4-MD2复合物。MD2结合脂质A后诱导TLR4二聚化,启动信号转导。LBP和CD14提高了系统对低浓度LPS的敏感性。
↘ 两条主要信号通路(TLR4下游)
MyD88依赖通路(主要炎症通路):通过IRAK–TRAF6–TAK1–IKK级联,激活NF-κB,诱导TNF-α、IL-1β、IL-6等促炎细胞因子产生,是LPS炎症反应的核心机制。
TRIF依赖通路:在内体中激活TBK1–IRF3,诱导I型干扰素(IFN-α/β)产生,并促进共刺激分子表达,连接先天免疫与适应性免疫。
↘ 细胞内识别与炎症放大
NOD样受体(Nod1/Nod2)识别细菌肽聚糖成分(不是直接识别LPS),通过RIP2激活NF-κB,与TLR4信号协同放大炎症反应。
↘ 炎症小体激活(第二放大机制)
LPS作为”第一信号”诱导NLRP3和pro-IL-1β表达;ATP等作为”第二信号”激活炎症小体,caspase-1剪切成熟IL-1β,进一步放大炎症级联反应。
↘ 核心转录调控节点
NF-κB是关键汇聚点,几乎所有LPS诱导的促炎基因均依赖其激活,是慢性炎症持续存在的核心分子基础。
↘ 主要效应分子
TNF-α、IL-1β、IL-6共同介导LPS的炎症效应;CRP为IL-6驱动的临床替代指标,常用于炎症监测。
↘ 剂量决定结局
低剂量长期暴露:持续激活NF-κB → 慢性低级别炎症 → 代谢性疾病等。
高剂量急性暴露:细胞因子风暴 → SIRS/脓毒性休克。
♥
▸ 脂多糖与动脉粥样硬化
通常认为胆固醇是动脉粥样硬化的主要原因,但往往忽视了炎症因素,尤其是LPS对内皮细胞的直接激活作用。
血管内皮细胞表达TLR4和CD14。LPS与TLR4结合后激活NF-κB信号通路,诱导细胞间黏附分子-1(ICAM-1)和血管细胞黏附分子-1(VCAM-1)的表达。这些黏附分子为循环中的单核细胞和淋巴细胞提供黏附位点。
↘ 脂多糖作用于内皮细胞促进动脉粥样硬化
黏附的白细胞随后穿越内皮进入血管壁,单核细胞分化为巨噬细胞,摄取氧化低密度脂蛋白(oxLDL),形成泡沫细胞。泡沫细胞的聚集构成脂肪纹,这是动脉粥样硬化的早期病变。
此外,LPS还可诱导内皮细胞产生促炎细胞因子(如TNF-α、IL-6),进一步促进炎症反应、白细胞浸润及血管平滑肌细胞增殖,加速病变进展。
同时,LPS可通过增加活性氧生成、减少一氧化氮(NO)生物利用度,引发内皮功能障碍,表现为血管舒张能力下降及促凝状态增强。
因此,持续升高的LPS水平可通过直接作用于内皮细胞,促进动脉粥样硬化的发生和发展。
▸ 脂多糖与2型糖尿病及胰岛素抵抗
长期升高的循环LPS可激活脂肪组织、肝脏等处的巨噬细胞,促使其分泌TNF-α、IL-6等炎症因子。这些因子通过激活丝氨酸/苏氨酸激酶,促进IRS-1发生丝氨酸磷酸化,从而抑制其正常的酪氨酸磷酸化,阻断胰岛素信号传导,导致胰岛素抵抗。
↘ 降低脂多糖可改善胰岛素敏感性并降低血糖
在此状态下,β细胞需代偿性分泌更多胰岛素以维持血糖,但长期负担会导致功能衰竭,最终发展为2型糖尿病。研究表明,2型糖尿病患者循环LPS水平显著升高,而降低LPS可改善胰岛素敏感性并降低血糖,支持其在发病中的关键作用。
因此,糖尿病管理不应仅关注血糖,还应调节肠道菌群,从源头降低LPS水平。该机制也解释了部分体重正常者患病的原因:即使无肥胖,若存在菌群失调和LPS升高,仍可诱发炎症和胰岛素抵抗。对肠道菌群及LPS风险的评估,有助于实现更早期干预与预防。
▸ 脂多糖与非酒精性脂肪性肝病
肠道来源的脂多糖经门静脉直接进入肝脏。肝脏中的库普弗细胞高表达Toll样受体4(TLR4),可识别LPS并激活NF-κB信号通路,进而释放TNF-α、IL-1β等促炎细胞因子。
这些炎症因子一方面抑制肝脏胰岛素信号通路,降低脂肪酸氧化能力,促进甘油三酯在肝细胞内沉积,从而加重脂肪变性;另一方面可激活肝星状细胞,促进胶原合成和细胞外基质沉积,推动肝纤维化进展。
随着炎症持续存在,疾病可由单纯性脂肪肝逐步发展为非酒精性脂肪性肝炎(NASH),甚至进一步进展为肝纤维化和肝硬化。
↘ NAFLD患者存在脂多糖水平显著升高
研究显示,非酒精性脂肪性肝病(NAFLD)患者的门静脉及循环LPS水平显著升高;而降低LPS水平可减轻肝脏炎症反应,改善脂肪变性及纤维化程度,进一步支持LPS在NAFLD中的关键作用。
这一机制同样解释了为什么部分不超重、无饮酒史的人群仍会发生NAFLD:即使没有传统代谢风险因素,肠道菌群失调导致的LPS升高,依然可以驱动肝脏炎症和疾病进展。
▸ 脂多糖与高血压
↘ 脂多糖通过减少NO生成提高血管张力并升高血压
脂多糖可激活血管内皮细胞NF-κB通路,诱导促炎因子释放,并抑制内皮型一氧化氮合酶(eNOS)表达与活性,减少NO生成。NO减少会削弱血管舒张、增强收缩,进而提高血管张力并升高血压。
同时,LPS可损伤内皮结构、增加血管壁僵硬度和外周阻力;长期炎症还促进血管重构,使高血压逐渐固定化。动物研究表明,慢性低剂量LPS可升高血压,而降低LPS水平有助于改善血压,支持其在血压调控中的作用。
▸ 脂多糖与肥胖的相互促进
肥胖可促进脂肪组织炎症和脂多糖蓄积,而LPS介导的炎症又进一步干扰能量代谢、促进脂肪储存,二者形成相互促进的正向循环。
编辑
↘ 脂多糖干扰能量代谢、肥胖又促进脂多糖积累
此外,LPS还可能通过影响下丘脑能量调节,干扰食欲和能量摄入,进一步推动体重增加。
研究表明,减重可降低脂肪组织炎症和LPS负荷,改善胰岛素敏感性,从而有助于打破这一循环。
这一循环提示,单纯依赖热量限制可能不足以优化代谢状态;若同时改善肠道菌群、降低LPS水平,可能更有助于提高减重效果和代谢改善程度。
▸ 脂多糖与神经系统疾病
循环LPS能够通过多种途径穿过血脑屏障进入脑实质,激活小胶质细胞产生炎症,所以外周LPS升高能够影响中枢神经系统功能,参与神经精神疾病发生发展。
LPS分子量大约10-20 kDa,属于大分子,但是研究证实,循环LPS能够穿过血脑屏障进入脑内,主要通过几个途径:
•血脑屏障上有特定转运系统:能够转运LPS进入脑内,低浓度LPS就能够转运;
•炎症能够破坏血脑屏障完整性:LPS本身引发外周炎症,炎症介质破坏血脑屏障,更多LPS能够进入脑内,形成恶性循环;
•绕过血脑屏障:LPS能够通过血脑屏障薄弱部位比如延髓最后区进入脑内,然后扩散到其他脑区。
↘ 脂多糖入脑激活小胶质细胞致炎
进入脑内的脂多糖能够激活小胶质细胞,小胶质细胞是脑内巨噬细胞,表达TLR4,激活后产生促炎细胞因子,引发神经炎症,损伤神经元,所以外周LPS升高能够增加中枢神经炎症,参与抑郁症、帕金森病、阿尔茨海默病发生发展。
LPS能够穿过血脑屏障进入中枢这个事实,把外周肠道LPS和中枢神经疾病连接起来了,肠道菌群失调→LPS升高→进入中枢→激活小胶质细胞→神经炎症→神经精神疾病,这个完整通路现在已经被越来越多研究证实,这就是”肠脑轴”重要分子机制,所以改善肠道菌群降低LPS,能够帮助预防和改善神经精神疾病。
这一机制也解释了为什么肠道菌群失调能够影响情绪和认知,脂多糖进入中枢激活炎症就是重要介导。
编辑
doi.org/10.1021/acschemneuro.8b00733
♥
1
质谱检测
脂质A中的脂肪酸为3-羟基脂肪酸(3OH-FAs),其链长和酰化模式具有多样性,并可能影响LPS的免疫原性。
由于酯化的3OH-FAs仅来源于脂质A,因此其水平可作为循环中LPS的替代指标。早期采用GC/MS对其进行分离和定量;近年来发展出HPLC/MS/MS方法,通过计算总3OH-FAs与游离3OH-FAs的差值来定量酯化部分,从而实现更高灵敏度和准确性的LPS检测。
2
血浆脂多糖定量
血浆LPS定量检测是评估内毒素血症的重要方法之一,常用鲎试验(LAL)可用于检测血浆中LPS水平,反映循环内毒素负荷。
LAL试验基于鲎变形细胞溶解物对LPS的反应,可通过比浊或显色方法进行定量,检测灵敏度可达皮克级别。
↘ 但需要注意:
血浆中存在多种干扰因素(如脂蛋白、蛋白结合等),可能影响检测结果,因此不同实验条件下数值存在一定变异。
不同研究中报告的参考范围有所差异,临床上更常用于相对变化和趋势评估,而非绝对诊断标准。血浆LPS检测可用于研究或特定情况下评估内毒素水平变化,但在实际应用中通常需要结合其他指标综合判断。
3
炎症标志物间接反映
脂多糖可激活免疫系统,诱导IL-6等炎症因子释放,进而促进肝脏合成CRP,因此CRP和IL-6可以反映炎症反应水平。但需要强调的是CRP和IL-6是非特异性炎症指标,会受到感染、损伤、慢性疾病等多种因素影响。
在排除急性感染等因素的前提下,CRP(尤其hs-CRP)可以作为低度慢性炎症的实用监测指标,用于跟踪干预效果,但不能单独用于判断LPS水平。
4
肠道菌群检测推断LPS产生潜力
通过16S rRNA或宏基因组测序分析肠道菌群组成,可以从菌群结构角度推断LPS产生潜力,用于评估风险趋势。
LPS来源于革兰氏阴性菌,因此其相对丰度与LPS产生潜力相关,但这种关系是间接的、受多因素影响。
例如:
拟杆菌门虽为革兰阴性,但其LPS炎症活性差异较大,并非全部强致炎;
菌群功能、宿主状态、屏障功能等都会影响最终LPS水平;
菌群检测更适合用于风险评估和干预方向指导,而不是直接判断LPS实际水平。
5
谷禾健康肠道菌群检测评估LPS相关风险
谷禾报告对很多菌群多指标整合分析,可以更系统地评估LPS相关风险趋势,用于指导个体化干预。我们方法的价值在于从菌群结构和功能角度提供参考信息,但仍需结合临床指标(如炎症指标、代谢指标)综合判断。
↘ 高LPS风险的菌群特征
谷禾报告中高LPS风险通常表现为革兰氏阴性菌相对丰度偏高,伴随促炎菌增加、短链脂肪酸产生菌减少及综合评分升高,提示较高的LPS产生与炎症潜力。
典型特征包括:
•革兰氏阴性菌相对丰度升高→LPS来源增加(潜力增加);
•B/F比值升高→菌群结构向阴性菌倾斜;
•促炎革兰氏阴性菌增加→LPS炎症活性增强;
•短链脂肪酸产生菌减少→抗炎能力下降+屏障支持减弱;
•综合风险评分偏高→多因素叠加的结果。
这些特征反映的是LPS相关风险升高的趋势,提示需要从菌群和生活方式层面进行干预。
↘ 低LPS风险的菌群特征
低LPS风险通常表现为菌群结构相对平衡、短链脂肪酸产生能力良好、综合评分较低,提示LPS产生和炎症风险较低。
主要特征包括:
•革兰氏阴性菌比例在合理范围→LPS来源稳定;
•B/F比值平衡→菌群结构稳定;
•促炎致病菌未见明显富集→炎症驱动较低;
•短链脂肪酸产生菌充足→有助于抗炎和维持屏障;
•综合评分低→整体风险较低
低风险代表当前状态良好,但仍需维持健康饮食和生活方式以保持稳定。
6
结合肠道通透性综合评估LPS
LPS风险评估需要同时考虑“产生”和”吸收”两方面,即菌群结构与肠道通透性共同决定循环LPS水平。
关键理解三种情况:
•屏障受损(肠漏)时→即使LPS产生不高,也可能吸收增加;
•屏障正常时→即使LPS产生略高,进入血液的量可能有限;
•两者同时异常→LPS升高风险最大。
综合评估可以区分问题来源(“产多了”还是”漏多了”),从而更有针对性地干预,例如侧重调菌或修复屏障。
♥
1
修复肠道屏障—减少LPS吸收的根本措施
无论LPS升高的原因如何,修复肠道屏障是降低其进入循环的根本措施。完整的肠道屏障通过维持上皮细胞间的紧密连接,阻止LPS经细胞间隙进入血液;当屏障受损时,紧密连接蛋白减少、通透性增加,LPS更易入血。因此,恢复紧密连接完整性可有效减少LPS吸收并降低其循环水平。
①补充乳铁蛋白
乳铁蛋白是一种铁结合糖蛋白,可促进肠上皮细胞增殖与更新,维持紧密连接蛋白表达和屏障完整性,从而降低肠道通透性,减少LPS进入循环并降低其水平。
此外,乳铁蛋白具有特异性LPS结合结构域,能高亲和力结合并中和LPS,阻断其与免疫细胞膜TLR4受体结合,抑制下游炎症信号通路,减少促炎因子产生,从而直接抑制炎症反应。
②补充谷氨酰胺
肠上皮细胞更新迅速,需充足谷氨酰胺供能;其充足时可维持上皮更新和紧密连接蛋白合成,保持屏障完整与正常通透性,减少LPS经细胞间隙入血。
肠漏或屏障受损时,补充谷氨酰胺可促进上皮修复、增强紧密连接、降低通透性,从而减少LPS吸收,对此类人群尤为有益。
2
其他减少LPS吸收与转运的措施
①维生素D
可以上调紧密连接蛋白,降低肠道通透性,减少LPS跨上皮转运。
②改善便秘
缩短肠道转运时间,减少LPS在肠腔内累积及与肠壁接触时间,从而降低吸收机会。
③减轻压力+改善睡眠
通过降低HPA轴激活和皮质醇水平,改善紧密连接与肠屏障功能,减少LPS进入循环。
3
减少其他LPS产生来源
①治疗SIBO
小肠细菌过度生长增加潜在LPS来源,在肠屏障受损时更易转化为循环LPS,抗生素等针对性治疗可降低细菌负荷,从源头减少LPS产生。
②牙周治疗
牙周感染中革兰阴性菌持续释放LPS,可通过受损牙龈进入循环,系统治疗减少这一持续输入源。
4
控制每餐脂肪摄入
我们之前介绍过,吃完脂肪后,肠道合成乳糜微粒运输脂肪,LPS亲脂,结合到乳糜微粒上,随乳糜微粒进入淋巴循环,然后进入体循环,因此每餐脂肪越多,合成的乳糜微粒越多,进入循环的LPS越多,所以控制每餐脂肪量减少乳糜微粒,进而减少进入循环的LPS,降低循环LPS水平。
简单饮食调整:一餐不要吃太多脂肪,全天均匀分布脂肪,可以减少餐后LPS升高,减少累积炎症。
5
增加膳食纤维,黄酮、多酚等摄入
①芹菜素(apigenin)
芹菜素是一种广泛存在于温热带蔬果中的黄酮类化合物,在芹菜、洋甘菊和欧芹中含量较高,具有肠道靶向的抗炎作用。
其可调节肠道菌群、强化肠道屏障,从而减少LPS吸收;在高脂饮食诱导的肥胖模型中,补充芹菜素可显著降低全身LPS水平及相关低度炎症。
②菊粉(Inulin)
益生元纤维如菊粉可促进抑制LPS的共生菌生长,并增加短链脂肪酸(SCFAs)生成,从而修复肠黏膜。
在一项针对2型糖尿病女性的随机对照试验中,补充菊粉8周使血浆LPS较安慰剂下降27.9%,同时炎症因子和胰岛素抵抗显著改善。
这些效应主要归因于其对肠道菌群的调节和对紧密连接蛋白的增强,从而抑制LPS易位,表明膳食纤维是降低内毒素血症和炎症的可行策略。
③利福昔明
利福昔明是一种肠道特异性抗生素,针对革兰氏阳性和革兰氏阴性菌,且不进行全身吸收。通过重塑肠道微生物群,利福昔明可以降低内源性内毒素的产生。
在非酒精性脂肪性肝炎(NASH)患者中,28天的利福昔明治疗显著降低了血清内毒素水平(内毒素活性下降,P=0.03),同时肝酶和炎症标志物也有所改善。
④姜黄素
姜黄素可通过强化肠道屏障并解毒内毒素,减少LPS介导的炎症。在饮食诱导的代谢综合征啮齿动物模型中,姜黄素提高肠道碱性磷酸酶活性(去磷酸化并中和LPS),维持紧密连接结构,从而防止血浆LPS升高。
在高脂饮食的糖尿病大鼠中,姜黄素可使升高的血清LPS和TNF-α恢复至正常水平。这些作用与其重塑肠道菌群(增加有益菌)及直接抑制LPS诱导的肠道信号通路有关。初步人体研究亦支持其作为辅助干预,用于降低代谢疾病中的内毒素血症和炎症。
⑤膳食纤维的综合作用
膳食纤维不被人体消化,进入结肠后作为双歧杆菌、乳杆菌等革兰阳性有益菌的发酵底物,促进其增殖并相对降低革兰阴性菌比例,从而减少LPS生成。
有益菌发酵产生的短链脂肪酸具有抗炎作用并增强肠道屏障,降低LPS吸收,形成双重降LPS效应。其中丁酸盐既是能量来源,又可强化屏障功能,是膳食纤维降低LPS的重要机制之一。
6
调节肠道菌群,选择合适的益生菌
①从源头调整肠道菌群减少脂多糖产生
LPS由肠道革兰氏阴性菌产生;其比例升高会增加LPS生成。通过饮食调节促进革兰氏阳性有益菌生长、降低阴性菌比例,可从源头减少LPS产生并降低其循环水平,这种改变具有长期稳定性。
益生菌和益生元均有助于调节菌群,因此饮食干预是更为根本且可持续的策略。相比单纯依赖抗炎药物,从源头控制菌群更能长期维持LPS在正常水平,促进整体健康。
②施用以革兰氏阳性菌为主的益生菌
选择的益生菌应该以双歧杆菌、乳杆菌等革兰氏阳性菌为主,这些本身没有LPS细胞壁,不会给肠道额外增加LPS,同时抑制革兰氏阴性菌过度生长,减少总LPS产生。
避免选择含有大量革兰氏阴性菌的益生菌产品,这些会给肠道额外增加LPS,增加LPS负担,反而达不到降低LPS的效果。
7
抑制LPS诱导的炎症反应
①Omega-3脂肪酸
改变细胞膜结构与脂筏环境,影响TLR4信号复合体激活,并通过resolvins等介质促进炎症消退,从而减轻LPS炎症反应。
②小剂量阿司匹林
通过COX抑制及NF-κB通路调节发挥整体抗炎作用,同时抑制血小板聚集,降低LPS相关心血管风险(主要为系统性抗炎效应的一部分)。
8
减少脂肪组织LPS蓄积
LPS亲脂容易蓄积在脂肪组织中,脂肪组织质量越大,蓄积LPS总量越多,脂肪组织不断缓慢释放LPS进入循环,维持循环LPS持续低水平升高,减肥减少脂肪组织质量,LPS蓄积总量减少,释放进入循环的LPS减少,循环LPS水平下降。
减肥同时改善肠道菌群,减少革兰氏阴性菌比例,进一步减少LPS产生,多重机制共同降低循环LPS水平,因此肥胖症减少体重可以显著降低LPS水平。
9
不同LPS风险分层个体化干预策略
不同LPS风险程度需要不同强度干预策略,低风险维持健康生活方式,中风险饮食调整加针对性营养补充,高风险先排查继发性疾病针对性治疗,个体化干预更高效。
•低LPS风险:不需要特殊药物干预,维持低LPS饮食模式和健康生活方式,几个月复查一次即可,长期维持可以稳定保持低LPS。
•中度LPS风险:饮食调整基础上,针对性补充营养补充剂,比如益生元、益生菌、乳铁蛋白,根据是否存在屏障损伤选择修复屏障营养,3-6个月复查调整方案。
•显著LPS风险:先排查继发性疾病,常见继发性疾病是SIBO、牙周病、便秘,针对性治疗继发性疾病,治疗后继续生活方式维持。
根据风险分层选择不同干预强度,避免低风险过度干预浪费金钱扰乱菌群,高风险干预不足达不到效果,个体化分层干预平衡效果和安全性,更合理高效。
♥
很多人从未关注过脂多糖(LPS),也很少意识到它与常见慢性疾病之间的联系。通过本文的系统梳理,我们从结构、机制到疾病,再到干预路径,已经建立起一个相对完整的认知框架。
⑴脂多糖的基本特性
脂多糖由脂质A、核心多糖和O抗原构成,其中脂质A是主要的免疫活性结构。其物理化学性质较为稳定,一般灭菌手段难以完全去除其活性。
⑵代谢与清除路径
脂多糖主要来源于肠道菌群。正常情况下,肠道屏障可以限制其大量进入体内;进入循环后的LPS主要由肝脏清除。部分研究提示,脂肪组织在一定程度上也可参与LPS相关过程。
⑶致病机制
LPS可通过TLR4被机体识别,激活先天免疫系统,诱导TNF-α、IL-6等促炎因子释放。当这种激活处于长期低水平状态时,可对多组织产生慢性损伤。
⑷疾病关联
脂多糖升高与多种慢性疾病存在相关性,包括代谢综合征、2型糖尿病、非酒精性脂肪肝(NAFLD)、动脉粥样硬化、高血压、肥胖,以及部分神经系统疾病和自身免疫疾病等。但其作用通常是多因素共同参与的一部分。
⑸脂多糖升高的常见因素
高脂饮食、过量饮酒、吸烟、膳食纤维摄入不足、长期使用广谱抗生素,以及SIBO、牙周炎、便秘、慢性压力、睡眠不足和肥胖等,都可能通过不同路径影响脂多糖水平。
⑹检测与评估方式
脂多糖可以通过血浆检测进行评估,同时CRP等炎症指标可作为间接参考。结合肠道菌群检测,有助于从“产生—吸收—炎症反应”多个维度综合评估风险。
⑺干预基本原则
围绕三个核心方向展开:
•减少产生(调节菌群);
•减少吸收(修复肠道屏障);
•减少转运与炎症反应(饮食与系统状态调节)。
同时,对于SIBO、牙周炎等明确来源,应进行针对性处理,并结合个体情况进行分层干预。
脂多糖(LPS)是革兰氏阴性菌细胞壁的特有成分。在正常生理状态下,少量脂多糖进入循环,有助于维持基础免疫激活。
但当多种因素叠加,导致循环中LPS长期处于偏高水平时,机体会进入一种“慢性低度炎症状态”,这一状态被认为与多种慢性疾病的发生发展密切相关。因此,长期维持LPS在合理范围内,是慢性疾病预防与管理中一个值得关注的重要环节。
主要参考文献
Wassenaar TM, Zimmermann K. Lipopolysaccharides in Food, Food Supplements, and Probiotics: Should We be Worried? Eur J Microbiol Immunol (Bp). 2018 Aug 21;8(3):63-69.
Kim HS, Kim S, Shin SJ, Park YH, Nam Y, Kim CW, Lee KW, Kim SM, Jung ID, Yang HD, Park YM, Moon M. Gram-negative bacteria and their lipopolysaccharides in Alzheimer’s disease: pathologic roles and therapeutic implications. Transl Neurodegener. 2021 Dec 7;10(1):49.
Magdaleno F, Blajszczak CC, Nieto N. Key events participating in the pathogenesis of alcoholic liver disease. Biomolecules. 2017;7:pii:E9.28134813.
Gomes JM, Costa JA, Alfenas RC. Metabolic endotoxemia and diabetes mellitus: A systematic review. Metabolism. 2017;68:133–44.
Roth J, Blatteis CM. Mechanisms of fever production and lysis: lessons from experimental LPS fever. Compr Physiol. 2014;4:1563–604.
Tume R, El Sherbiny S, Bono R, Gautier T, Pais de Barros JP and Meroño T (2025) The balance between proinflammatory, “bad”, and immunomodulatory, “good”, lipopolysaccharide for understanding gut-derived systemic inflammation. Front. Immunol. 16:1588129.
Catorce MN, Gevorkian G. LPS-induced murine neuroinflammation model: main features and suitability for pre-clinical assessment of nutraceuticals. Curr Neuropharmacol. 2016
Laugerette F, Vors C, Peretti N, Michalski MC. Complex links between dietary lipids, endogenous endotoxins and metabolic inflammation. Biochimie. 2011;93:39–45
Neyen C, Lemaitre B. Sensing Gram-negative bacteria: a phylogenetic perspective. Curr Opin Immunol. 2016;38:8–17.
Candelli, M.; Franza, L.; Pignataro, G.; Ojetti, V.; Covino, M.; Piccioni, A.; Gasbarrini, A.; Franceschi, F. Interaction between Lipopolysaccharide and Gut Microbiota in Inflammatory Bowel Diseases. Int. J. Mol. Sci. 2021, 22, 6242.
Szentirmai, É., Buckley, K., Massie, A.R. et al. Lipopolysaccharide-mediated effects of the microbiota on sleep and body temperature. Sci Rep 14, 27378 (2024).
Citronberg JS, Curtis KR, White E, Newcomb PA, Newton K, Atkinson C, Song X, Lampe JW, Hullar MA. Association of gut microbial communities with plasma lipopolysaccharide-binding protein (LBP) in premenopausal women. ISME J. 2018 Jun;12(7):1631-1641.
Lin TL, Shu CC, Chen YM, Lu JJ, Wu TS, Lai WF, Tzeng CM, Lai HC, Lu CC. Like Cures Like: Pharmacological Activity of Anti-Inflammatory Lipopolysaccharides From Gut Microbiome. Front Pharmacol. 2020 Apr 30;11:554.
d’Hennezel E, Abubucker S, Murphy LO, Cullen TW. Total Lipopolysaccharide from the Human Gut Microbiome Silences Toll-Like Receptor Signaling. mSystems. 2017 Nov 14;2(6):e00046-17.
Apigenin Alleviates Obesity-Associated Metabolic Syndrome by Regulating the Composition of the Gut Microbiome.. Qiao Y, Zhang Z, Zhai Y, Yan X, Zhou W, Liu H, Guan L and Peng L. (Front. Microbiol. 12:805827. (2022))
Orange juice neutralizes the proinflammatory effect of a high-fat, high-carbohydrate meal and prevents endotoxin increase and Toll-like receptor expression.. Ghanim H, Sia CL, Upadhyay M, Korzeniewski K, Viswanathan P, Abuaysheh S, Mohanty P, Dandona P.. (Am J Clin Nutr. 2010 Apr;91(4):940-9.)
Oral spore-based probiotic supplementation was associated with reduced incidence of post-prandial dietary endotoxin, triglycerides, and disease risk biomarkers.. McFarlin BK, Henning AL, Bowman EM, Gary MA, Carbajal KM.. (World Journal of Gastrointestinal Pathophysiology. 2017;8(3):117-117.)
Effect of Probiotic Supplementation on Intestinal Permeability in Overweight and Obesity: A Systematic Review of Randomized Controlled Trials and Animal Studies.. DiMattia Z, Damani JJ, Van Syoc E, Rogers CJ.. (Adv Nutr. 2024 Jan;15(1):100162.)
Inulin controls inflammation and metabolic endotoxemia in women with type 2 diabetes mellitus: a randomized-controlled clinical trial.. Dehghan P, Gargari BP, Jafar-Abadi MA, Aliasgharzadeh A.. (Int J Food Sci Nutr. 2014 Feb;65(1):117-23.)
Efficacy of rifaximin on circulating endotoxins and cytokines in patients with nonalcoholic fatty liver disease.. Gangarapu, Venkatanarayanaa; Ince, Ali Tüzüna; Baysal, Birola; Kayar, Yusufa; Kiliç, Ulkanb; Gök, Özlemb; Uysal, Ömerc; Şenturk, Hakana.. (European Journal of Gastroenterology & Hepatology 27(7):p 840-845, July 2015.)
Rifaximin: beyond the traditional antibiotic activity.. Calanni, F., Renzulli, C., Barbanti, M. et al.. (J Antibiot 67, 667–670 (2014).)
Improvement of intestinal barrier function, gut microbiota, and metabolic endotoxemia in type 2 diabetes rats by curcumin.. Huang J, Guan B, Lin L, Wang Y.. (Bioengineered. 2021 Dec;12(2):11947-11958.)
谷禾健康
简明弯曲杆菌(Campylobacter concisus)是一种革兰氏阴性、微需氧的螺旋形或弯曲杆状菌,隶属于弯曲杆菌属(Campylobacter),是口腔微生物群的成员之一。
C.concisus在人类口腔中很常见,超过90%的人口腔中可检出。但有研究认为其丰度升高可能与牙周炎、牙龈炎及部分口腔恶性病变相关。
此外,研究表明该菌不仅存在于口腔,还可在胃肠道和呼吸道中检测到,这可能与其具备运动性和趋化能力,从而实现跨部位定植与迁移有关。并且其迁移至肠道可能作为一种病原体,与腹泻、胃肠炎和炎症性肠病有关。研究发现,该细菌丰度在腹泻患者、新诊断的克罗恩病(CD)儿童和溃疡性结肠炎成人中显著高于对照组。
C.concisus具有高度基因变异性,不同菌株在基因组成、毒力因子及代谢基因上差异显著,这种高度异质性被认为是其在健康人群与多种疾病中均可检出的重要原因之一。部分菌株携带IV型或VI型分泌系统(T4SS/T6SS),参与毒素分泌和宿主细胞入侵,但其不具备碳水化合物代谢能力。
还有一些研究发现,其在不同疾病状态下丰度会出现变化,如在自闭症谱系障碍中丰度降低;而在新冠病毒感染(COVID-19)患者中,Campylobacter属在咽部显著富集,表现为机会致病菌,可能通过调节免疫反应及影响宿主受体表达参与感染过程;在肺结核中,则可能随口腔菌群向下呼吸道迁移而异常出现。
Campylobacter concisus兼具共生与致病双重属性,系统解析其在不同微环境中的丰度变化及作用,将有助于深入理解其在微生物-宿主互作中的功能,并为相关疾病的诊断与干预提供新的思路。
♥
1
形态特征
简明弯曲杆菌(Campylobacter concisus)是弯曲杆菌属(Campylobacter)下的一个菌种。
注:弯曲杆菌属中研究最深入的物种是肠道病原体空肠弯曲杆菌,这是一种目前被公认为全球急性腹泻和胃肠炎的主要病原细菌,每年导致成人和儿童约4亿例胃肠炎。但在过去十年中,越来越多的证据表明,弯曲杆菌属的其他成员,包括C.concretus、C.gracilis、C.upsaliensis和C.lari,也可能在人体疾病中发挥作用。
•形态:弯曲或螺旋状杆菌,单极鞭毛(一端单鞭毛),大小约0.2–0.5 μm × 0.5–5 μm,具有运动能力。
Campylobacter concisus的电子显微图像
doi: 10.3748/wjg.v20.i5.1259.
•染色特性:革兰氏染色阴性,但不易着色,常需特殊染色(如银染)观察。
•其他特征:细胞壁较薄,无芽孢,外膜富含脂多糖。
2
生长环境
•氧气需求:传统上被归类为微需氧,在氧气含量~5%且CO₂升高时生长最佳。
•适宜温度:最佳温度约为37°C(人体温度)。
•适宜pH:6.5–7.5。
•特殊情况:C.concisus在有特定电子受体可用的情况下,也能在厌氧条件下生长。
3
人群分布
人体是C.concisus的重要栖息地,口腔是主要定殖部位,亦可见于肠道。
•健康人群
口腔定植:普遍存在,检出率超过90%,主要分布于牙菌斑和唾液。
肠道定植:约10%健康人肠道可分离到,但通常为低丰度菌群。
不同年龄组唾液样本中C.concisus的检测和分离率
编辑
doi: 10.3389/fcimb.2018.00243.
•疾病人群
炎症性肠病患者:克罗恩病(CD)和溃疡性结肠炎(UC)患者肠道检出率显著升高。
腹泻患者:发展中国家儿童腹泻病例中占比可达25%。
其他疾病:食管腺癌、肺癌等肿瘤患者中偶有检出,可能与慢性炎症相关。
4
代谢能力
•非糖代谢型:不发酵碳水化合物,不能进行典型糖酵解;依赖氨基酸和短肽作为主要碳/能量来源。
在糖酵解过程中缺乏若干关键酶,包括葡萄糖激酶和磷果糖激酶,以及氧化戊糖磷酸途径。
•不完整的三羧酸(TCA)循环:TCA循环不完整,代谢能力有限,合成能力较弱,需依赖外源底物补充中间代谢物。
C.concisus中识别出的酶及其中枢碳代谢途径
编辑
doi: 10.1186/s13099-020-00349-6.
•以氢气为核心的能量代谢:明显依赖氢气(H₂)作为电子供体,具有两套氢化酶系统,在富氢环境(如口腔)中生长优势明显。
•分泌系统:携带IV型和VI型分泌系统(T4SS/T6SS),参与毒素分泌和宿主细胞入侵。
T4SS是一种多功能分泌系统,可转运DNA、分泌蛋白效应子;可能参与毒力基因传播、基因组重塑。
T6SS报道较少,但部分菌株中有发现,可能有助于细菌间竞争(最重要)。
5
基因组信息
全基因组测序显示,Campylobacter concisus基因组大小约为1.8–2.1Mb,比许多肠道病原体更小但变异性更大。不同菌株之间在基因组成、毒力因子及代谢相关基因上差异较大,这种高度异质性被认为是其在健康人群与多种疾病中均可检出的重要原因之一。
• 主要分为GS1和GS2两种基因型
C.concisus通常分为两个基因种(GS1和GS2):GS1基因组较小、GC含量较低且编码基因较少;GS2基因组更大、编码能力更强,并更常携带质粒(如pSma1、pICON),显示出更高的遗传可塑性和环境适应能力。
注:在评估采集部位时,肠道黏膜样本中GS2分离株占主导,口腔样本中GS1占主导。
• 不同分型的毒力与致病性不同
在毒力基因方面,两类基因种存在分化:Zot主要见于GS1,介导上皮紧密连接破坏并增加肠通透性;Exo9则多见于GS2,可能与细胞毒性及侵袭性相关。
研究发现,血性腹泻仅存在于感染GS2 C.concreus菌株的个体中。此外,GS2表现出更高水平的上皮侵袭和易位。
总体而言,GS1和GS2代表了C.concisus两种不同的进化与功能策略:GS1更偏向于通过屏障破坏影响宿主,而GS2则具有更强的适应性和潜在致病能力。二者共同构成了该菌复杂的致病模式,也解释了其在不同个体和疾病状态中表现不一致的现象。
6
致病因素
虽然Campylobacter concisus常作为口腔共生菌存在,但在特定条件下可转变为致病菌。C.concisus 的致病性具有明显的菌株依赖性和多机制协同特征,其毒素、分泌系统、黏附与侵袭结构、生物膜及免疫调控因子共同作用于上皮屏障和宿主免疫,构建复杂的致病网络。
• 毒力因子
在毒力因子方面,Zot(zonula occludens toxin)最具代表性,可破坏上皮紧密连接并增加肠通透性,从而促进抗原和细菌成分进入固有层并诱发炎症。
Exo9则多见于另一类菌株(多为GS2),可能参与细胞毒性和组织损伤。此外,C.concisus普遍携带VI型分泌系统(T4SS),用于分泌效应蛋白并介导细菌竞争与宿主相互作用,部分菌株还具有T6SS,进一步增强其致病潜力。
• 黏附与侵袭
其次,在黏附与侵袭方面,C.concisus通过鞭毛介导的运动与黏附及对黏液的趋化作用定植于肠上皮,部分菌株具备显著侵袭能力;其中慢性肠病来源菌株侵袭性更强,可能与特定质粒及相关蛋白表达有关。基因组分析将其分为“黏附/侵袭型”和“黏附/产毒型”,提示不同菌株采用不同致病策略。
Campylobacter concisus对宿主的附着与入侵
编辑
doi: 10.3389/fcimb.2012.00004.
• 宿主免疫调控与炎症反应
在宿主免疫与炎症反应方面,C.concisus可激活多条炎症通路,诱导上皮细胞产生IL-8、IL-12等并通过NF-κB放大炎症;侵袭性菌株还可诱导IFN-γ,形成类似克罗恩病的Th1型反应。
此外,其在IFN-γ刺激下上调PD-L1表达,可能抑制T细胞反应并促进持续感染,同时还能诱导上皮细胞凋亡,直接破坏组织完整性。
• 生物膜形成能力
在生态与屏障破坏机制上,C. concisus 通常来源于口腔,可通过吞咽等途径进入肠道,在肠道菌群失衡或炎症环境下定植。其生物膜形成能力(如luxS基因)和群体感应系统有助于其在不同生态位存活并抵抗不利环境。
注:LuxS在该细菌的生物膜形成、入侵和运动中起作用。
C.concisus的生物膜形成
编辑
doi: 10.3390/microorganisms12010046.
多项研究表明,LuxS参与口腔细菌间的跨种信号传导,在毒力及牙菌斑生物膜形成中具有重要作用;其通过合成自身诱导物2(AI-2)参与群体感应过程。
7
抗生素敏感性
• 耐药的抗生素
多项研究表明,C. concisus对杆菌肽、苜蓿酸、利福平和万古霉素耐药,进一步研究发现部分菌株对庆大霉素耐药。
• 敏感的抗生素
而对大环内酯类(如阿奇霉素)、氯霉素、甲硝唑、克林达霉素、红霉素、四环素及青霉素、氟喹诺酮类(如环丙沙星)敏感。还证实米诺环素有效,但在亚致死浓度下长期暴露后其MIC升高,提示存在获得性耐药潜力。
注:约5%菌株对环丙沙星耐药,可能与喹诺酮类药物使用有关。
8
与其他微生物群的互作
• 口腔微生物组
C.concisus与多种口腔细菌共存,并参与混合生物膜,生物膜能抵御环境压力,并可能作为口腔-肠道易位的储存库。
与牙周病原体(包括Fusobacterium nucleatum和Prevotella属)形成共聚体。
• 肠道微生物组
IBD患者中C.concisus数量增加,伴随细菌群落组成向菌群失调转变。
质粒携带基因促进肠道内的水平基因转移(质粒pSma1、pICON及相关元素)。
♥
简明弯曲杆菌(C. concisus)于1981年首次被鉴定为口腔微生物群成员,通常作为共生菌广泛存在于牙菌斑、龈下菌群及唾液中。
但近来不少研究发现其与一些口腔疾病密切相关,多表现为“机会致病”和“群落依赖型”作用,而非单一致病菌。
1
牙周炎
编辑
影响因子:3.939
• 牙周炎患者C.concisus丰度高于健康人群
有研究比较自然发生牙周炎的儿童与成人、健康对照及不同类型牙周炎人群的龈下菌群发现,牙周炎个体中C. concisus数量高于健康者。研究人员认为,龈下菌群组成反映了从健康到牙周炎的过渡状态。C. concisus在初期牙周炎中的检出率高于健康者(35%),但与牙龈炎(32%)和既有牙周炎(32%)相近。
• Campylobacter群落的丰度变化可能反映疾病阶段
在牙周炎中,C. concisus 通常作为龈下菌群的一部分,其丰度变化并非孤立,而是随整个Campylobacter属及口腔微生态改变而波动。研究表明,在牙周炎进展过程中,C. concisus与C.rectus、C. gracilis、C. curvus 等共同构成的Campylobacter群落结构发生显著重塑,其相对丰度变化可反映疾病阶段,但单一物种的绝对丰度并非稳定升高。
牙周炎与对照组中不同弯曲杆菌的患病率
编辑
doi: 10.3402/jom.v6.25874.
• 主要作用机制
其作用主要包括:
•参与牙菌斑生物膜形成(与LuxS/AI-2群体感应相关);
•通过鞭毛运动增强在龈下厌氧环境中的定植能力;
•与“红色复合体”等经典牙周致病菌协同,促进炎症微环境形成;
因此,C. concisus更像是牙周“生态失衡的参与者或标志物”。
2
牙龈炎
研究发现,在接受牙龈下刮治的成人牙周炎患者中,针对C.concisus的血清抗体水平高于健康人群。
• 可能与牙龈出血有关
一项研究从健康儿童恒牙与乳牙的龈下菌斑中分离出45种微生物,发现C. concisus在恒牙中的检出率显著高于乳牙(P<0.001),且其存在与恒牙出血指数显著相关。
这一结果与其先前研究一致,即C. concisus与快速进展性牙周炎年轻患者的出血表现相关。此外,吸烟者中C. concisus的检出率和数量均显著高于非吸烟者。
• 与天冬氨酸氨基转移酶活性升高相关
有研究指出,天冬氨酸氨基转移酶(AST)在严重牙龈炎症和进行性附着脱落部位的牙龈新肾盂液(GCF)中显著升高。在早发性牙周炎患者中,牙龈沟液(GCF)中AST活性升高与牙周下菌群相关。包括C. concisus在内的七种细菌在AST阳性位点的检出率显著高于阴性位点,且C. concisus与AST活性呈较强正相关(排名第四)。
3
口腔潜在恶性病变
编辑
影响因子:4.556
• 在一些口腔病变中丰度增加
在口腔潜在恶性病变(如均质白斑、增殖性疣白斑)及口腔鳞状细胞癌(OSCC)中,整体表现为菌群失衡与多样性下降,其中Campylobacterota在部分病变(如PVL)中呈富集趋势。C.concisus在增殖性疣白斑(PVL)也呈现增加趋势。
• 潜在可能机制包括:
•参与慢性炎症维持,间接促进肿瘤微环境形成;
•通过免疫调节(如诱导炎症因子或免疫抑制通路)影响局部免疫监视;
•与其他致病菌(如Fusobacterium)协同,加剧上皮损伤和细胞增殖异常。
♥
▸ C.concisus可以从口腔转移至肠道
虽然Campylobacter concisus主要定植于口腔环境中,但在部分人群的肠道内也可以检测到其存在。关于其转移途径,目前普遍认为主要包括两种方式:血源性和肠内途径。
口腔细菌从口腔向肠道迁移的可能途径
编辑
• 血源性通路
日常活动(如用力咀嚼、刷牙)及牙科操作(如正畸、拔牙)造成的口腔机械损伤可使口腔细菌进入血液循环。
研究还发现,牙周炎和口腔癌患者血液中的口腔细菌水平升高,且牙周炎症可促进细菌向肝脏和脾脏播散,提示炎症在其血行传播中具有关键作用。
此外,口腔细菌可侵入并存活于树突状细胞和巨噬细胞内,可能借助免疫细胞作为“特洛伊木马”从口腔黏膜迁移至肠道黏膜。
• 肠道扩散
口腔细菌还可通过肠道途径传播。人每天约吞咽600次,约1.5升唾液中含有大量口腔常驻菌,但在正常情况下,胃肠道屏障及肠道菌群的定植抵抗可阻止其在肠道定植。
当这种微生态平衡被破坏时,口腔细菌在肠道中的定植会增加。例如,抗生素可扰乱肠道菌群,为口腔细菌在肠道定植和扩增提供生态位。即肠道菌群失调可能是口腔病原体异位定植的前提条件。
多项研究表明,口腔特定微生物在肠道的异位定植可能参与胃肠疾病(如炎症性肠病)的发生发展,下面加以介绍:
1
急性胃肠炎、腹泻
• 腹泻患者C.concisus的肠道检出率较高
在比利时开展的一项前瞻性研究中,从腹泻患者粪便中分离出C. concisus,其检出率为儿童2.4%(n=3165)和成人1.5%(n=1265)。在检出C.concisus的78名儿童中,72%出现肠道症状(62%腹泻,22%呕吐),成人中89.4%表现为腹泻。
此外,在一项研究中,患有C.concretus的老年患者往往表现出更持久的腹泻。
• 肠炎患者中更易存在C.concisus
在意大利开展的研究显示,在288例肠炎儿童中,C.jejuni(6.9%)和C. coli(2%)较为常见,而C.upsaliensis和C.concisus的检出率为0.7%。
相比之下,南非肠炎儿童中C. concisus的分离率显著更高(17.0%),为第三常见菌种,仅次于C. jejuni(33.4%)和C. upsaliensis(23.7%)。
但由于缺乏健康对照,该研究无法评估C.concisus在腹泻和肠炎中的致病作用。
• 可能作为胃炎的潜在生物标志物
编辑
影响因子:10.164
通过宏基因组测序分析78例胃炎患者与50名健康人群的舌苔微生物,发现舌苔菌群变化与胃炎的发生及其癌前进程密切相关。
Campylobacter concisus与胃炎癌前级联过程显著相关且可在舌苔与胃液中检测到,被认为可能成为
胃炎(包括癌前级联反应)潜在的生物标志物。
2
炎症性肠病
弯曲杆菌(Campylobacter)与炎症性肠病(IBD)之间的可能关联最早于1984年被研究,较新的研究表明,C. concisus感染可能与炎症性肠病风险增加及炎症性肠病复发有关。
• 炎症性肠病患者C.concisus检出率远超常人
研究发现新诊断儿童克罗恩病(CD)患者中C.concisus检出率显著高于对照组(51%vs2%)。此结果在后续研究中得到支持:CD患儿粪便中C.concisus DNA阳性率达65%,明显高于健康及非IBD对照。
此外,在炎症性肠病患者肠道组织中也检测到较高阳性率(IBD 58.3%,CD 66.7%),且从IBD患者肠道中分离出的C.concisus菌株主要是GS2基因型。
研究还发现C.concisus在溃疡性结肠炎(UC)患者中检出率显著升高(33.3%vs10.8%)。进一步证实,UC患者活检中C. concisus阳性率高达77%,显著高于对照组(36%)。基于这些发现,研究者认为C.concisus可能与IBD相关。
• 损伤肠道上皮屏障
在一项最新研究中,在C.concisus阳性儿童血清中鉴定出37种免疫反应蛋白,其中鞭毛蛋白B、ATP合成酶F1 α亚基和外膜蛋白18为所有克罗恩病患者共同识别的主要抗原。至少6种蛋白具有宿主细胞黏附功能,提示该菌可穿越黏液层并附着于肠上皮。
C. concisus可损伤肠上皮屏障。其在48小时内诱导人肠上皮HT-29细胞凋亡,并使紧密连接蛋白claudin-5表达降至约66%,同时引起紧密连接蛋白重新分布。此外,部分菌株获得携带zot基因的前噬菌体,其Zot蛋白可导致人肠上皮Caco-2细胞死亡。
致病性C.concisus菌株的潜在致病机制
编辑
doi: 10.3389/fcimb.2018.00243.
• 影响免疫反应、促进肠道炎症
C.concisus可增强肠上皮细胞和巨噬细胞对共生菌的免疫反应。研究表明,其Zot蛋白预处理THP-1巨噬细胞和HT-29细胞后,可显著增强TNF-α产生。同时,与C.concisus共孵育可上调HT-29细胞中识别LPS的TLR4和MD-2表达。由于TLR低表达有助于维持对肠道菌群的免疫耐受,其上调可能使上皮细胞对原本耐受的共生菌产生反应,从而诱发炎症。
C.concisus还可能影响适应性免疫。其在γ干扰素敏化的HT-29细胞中上调免疫检查点蛋白PD-L1的上皮表达,提示在诱导先天炎症的同时可能抑制T细胞功能。
注:C.concisus诱导了肠道上皮细胞中IL-8的产生,以及人类巨噬细胞中IL-8和TNF-α的产生。
3
Barrett食管
编辑
影响因子:8.313
还有C.concisus与巴雷特食管(BE)的关联。BE是由胃十二指肠反流引起的食管鳞状上皮被柱状上皮替代的病变。
• 巴雷特食管患者存在高水平的C.concisus
研究发现,57%的BE患者中存在高水平的C.concisus和C.rectus,而对照组未检出,其中C. concisus为吸取液和黏膜样本中最常见的菌。
研究人员推测,具有致病性及潜在产毒能力的C.concisus可能参与食管疾病的发生、维持或加重。
♥
1
自闭症中减少
编辑
影响因子:12.121
一项对口腔微生物组的大规模宏基因组分析中显示,在自闭症谱系障碍(ASD)中,自闭症儿童中Campylobacter concisus丰度减少。
• 可能机制
在机制上,可从“微生物-肠道-脑轴”解释:口腔微生物可经吞咽进入肠道并重塑菌群结构。屏障受损后,微生物代谢产物和炎症因子更易进入循环,从而影响中枢神经系统功能,这也是ASD的重要假说之一。
2
新型冠状病毒感染患者中增加
编辑
影响因子:3.242
在新型冠状病毒感染(COVID-19)换着中,咽部微生物组分析显示Campylobacter concisus显著富集,属于机会致病菌的一部分。
• 可能机制
研究人员认为其可能机制包括:调节宿主免疫反应、参与炎症过程,以及通过影响宿主受体(如ACE2)表达间接促进病毒感染或加重病情。此外,其富集还可能增加继发性细菌感染风险。
3
肺结核患者中异常分布
影响因子:2.989
在肺结核(PTB)中,Campylobacter concisus表现为异常分布。Campylobacter concisus作为口腔常见菌之一,可能在下呼吸道中异常出现或相对富集,反映其由上呼吸道向肺部迁移的过程。
• 可能机制
首先,呼吸道屏障功能受损使口腔来源菌(如Campylobacter concisus)更易定植于下呼吸道;其次,菌群失衡和微生物迁移可改变局部免疫微环境,影响宿主对结核分枝杆菌的免疫应答;此外,Campylobacter concisus等机会致病菌的存在可能加重炎症反应或参与继发感染,从而促进疾病进展。
♥
综合全部证据,C.concisus是一种与炎症性肠病、显微镜结肠炎明确相关的肠道致病菌,它依赖肠道细菌产生的H₂生长,不能利用碳水化合物。
可改变的风险因素:
•不良口腔卫生,增加肠道丰度;
•吸烟、过量饮酒,增加丰度和炎症风险;
•高糖饮食可能促进C.concisus生长,因为虽然它不发酵糖,但高糖改变了其他菌群的代谢,间接利于其生长;
•高脂肪饮食改变胆汁酸分泌,可能有利于弯曲杆菌生长;
•长期使用PPIs、NSAIDs ,增加丰度和疾病风险;
•一些抗生素可有效降低丰度,但需注意耐药性。
•饮食影响:高纤维产生更多H₂理论上可能促进生长,但膳食纤维对屏障的保护作用可能抵消这一效应,所以注意饮食中膳食纤维的摄入。
但是注意不是所有携带C. concisus都需要治疗,良好的生活方式和口腔卫生可以降低其丰度,在明确相关疾病活动时,可考虑短期针对性抗生素治疗,同时饮食调整和益生菌有助于恢复肠道菌群不利于其定植。
主要参考文献
Liu F, Ma R, Wang Y, Zhang L. The Clinical Importance of Campylobacter concisus and Other Human Hosted Campylobacter Species. Front Cell Infect Microbiol. 2018 Jul 24;8:243.
Kaakoush NO, Mitchell HM. Campylobacter concisus – A new player in intestinal disease. Front Cell Infect Microbiol. 2012 Feb 3;2:4.
Cui J, Cui H, Yang M, Du S, Li J, Li Y, Liu L, Zhang X, Li S. Tongue coating microbiome as a potential biomarker for gastritis including precancerous cascade. Protein Cell. 2019 Jul;10(7):496-509.
Han Y, Wang B, Gao H, He C, Hua R, Liang C, Xin S, Wang Y, Xu J. Insight into the Relationship between Oral Microbiota and the Inflammatory Bowel Disease. Microorganisms. 2022 Sep 19;10(9):1868.
Henne K, Fuchs F, Kruth S, Horz HP, Conrads G. Shifts in Campylobacter species abundance may reflect general microbial community shifts in periodontitis progression. J Oral Microbiol. 2014 Nov 19;6:25874.
Kofol R, Pirs M, Kotar T, Lejko Zupanc T, Celar Šturm A, Kukec A, Matos T, Triglav T. Genetic Diversity of Campylobacter concisus Isolates from Slovenian Patients with Infectious Diarrhoea. Microorganisms. 2025 Dec 31;14(1):87.
Lee SA, Liu F, Yun DY, Riordan SM, Tay ACY, Liu L, Lee CS, Zhang L. Campylobacter concisus upregulates PD-L1 mRNA expression in IFN-γ sensitized intestinal epithelial cells and induces cell death in esophageal epithelial cells. J Oral Microbiol. 2021 Sep 14;13(1):1978732.
Kirk KF, Méric G, Nielsen HL, Pascoe B, Sheppard SK, Thorlacius-Ussing O, Nielsen H. Molecular epidemiology and comparative genomics of Campylobacter concisus strains from saliva, faeces and gut mucosal biopsies in inflammatory bowel disease. Sci Rep. 2018 Jan 30;8(1):1902.
Huq M, Wahid SUH, Istivan T. Biofilm Formation in Campylobacter concisus: The Role of the luxS Gene. Microorganisms. 2023 Dec 27;12(1):46.
Yeow M, Liu F, Ma R, Williams TJ, Riordan SM, Zhang L. Analyses of energy metabolism and stress defence provide insights into Campylobacter concisus growth and pathogenicity. Gut Pathog. 2020 Mar 5;12:13.
Herreros-Pomares A, Hervás D, Bagan-Debón L, Jantus-Lewintre E, Gimeno-Cardona C, Bagan J. On the Oral Microbiome of Oral Potentially Malignant and Malignant Disorders: Dysbiosis, Loss of Diversity, and Pathogens Enrichment. Int J Mol Sci. 2023 Feb 9;24(4):3466.
Manghi P, Filosi M, Zolfo M, Casten LG, Garcia-Valiente A, Mattevi S, Heidrich V, Golzato D, Perini S, Thomas AM, Montalbano S, Cancellieri S, Waldron L, Hall JB, Xu S, Volfovsky N, Green Snyder L, Feliciano P, Asnicar F, Valles-Colomer M, Michaelson JJ, Segata N, Domenici E. Large-scale metagenomic analysis of oral microbiomes reveals markers for autism spectrum disorders. Nat Commun. 2024 Nov 11;15(1):9743.
Xiong D, Muema C, Zhang X, Pan X, Xiong J, Yang H, Yu J, Wei H. Enriched Opportunistic Pathogens Revealed by Metagenomic Sequencing Hint Potential Linkages between Pharyngeal Microbiota and COVID-19. Virol Sin. 2021 Oct;36(5):924-933.
Qin M, Ding W, Qin L, Liang R, Guo Y, Zhao Y, Xu H, Wen Y, Pang Y, Li L. Dysbiosis associated with enhanced microbial mobility across the respiratory tract in pulmonary tuberculosis patients. BMC Microbiol. 2025 Aug 12;25(1):499.
Zhang L, Liu F, Xue J, Lee SA, Liu L, Riordan SM. Bacterial Species Associated With Human Inflammatory Bowel Disease and Their Pathogenic Mechanisms. Front Microbiol. 2022 Feb 24;13:801892.
谷禾健康
牙龈卟啉单胞菌(Porphyromonas gingivalis)是一种革兰氏阴性、绝对厌氧的杆状细菌,是生活在口腔内的700多种细菌中的一员,常定植于牙龈下菌斑,并且与牙周病理密切相关。
发表在《微生物学前沿》杂志上的一篇综述指出,数百种口腔细菌通常在相对平衡的环境中共存,但环境一旦改变,部分细菌可能占据优势,从而引发龋齿或牙龈疾病。
牙龈卟啉单胞菌(P.gingivalis)之所以能在口腔微生态失衡中“占据上风”,与其独特的生存策略密切相关:一方面依赖铁/血红素获取形成代谢优势;另一方面通过多种毒力因子(如脂多糖、牙龈蛋白酶、菌毛黏附结构以及外膜囊泡等)实现黏附侵袭、营养掠夺与免疫调控。
致病过程中,P.gingivalis可破坏上皮屏障与结缔组织稳态,诱导并放大炎症反应,同时干扰补体与吞噬清除等先天免疫环节,进而促使炎症持续化,最终表现为牙周附着丧失与牙槽骨吸收等典型病理改变。
更值得关注的是,牙周局部的炎症与细菌相关分子并不局限于口腔。牙龈出血、牙周袋溃疡面等为细菌或其组分进入体内提供了“通道”,它们可通过血液循环(以及吞咽/吸入等途径)到达远处组织,触发系统性炎症反应或加重既有疾病风险。近年来的研究不断提示,牙周炎与多种全身疾病之间存在流行病学与机制层面的联系,而P. gingivalis作为“关键病原体”可能在其中扮演重要角色,例如与心血管系统疾病风险增加、以及多种慢性炎症相关疾病(糖尿病、阿尔兹海默病、溃疡性结肠炎、类风湿性关节炎)的发生发展相互关联。
本文将围绕P.gingivalis的核心致病机制、其从口腔到全身的潜在健康影响及相关证据,并对干预策略进行概述与讨论。
♥
牙龈卟啉单胞菌(Porphyromonas gingivalis)是一种革兰氏阴性、严格厌氧的杆状细菌,主要定植于龈下(牙龈线以下)牙菌斑,是慢性牙周炎的主要致病菌。它是牙周病的重要致病菌之一:即使丰度较低,也能影响口腔菌群与宿主反应,诱发菌群失调和炎症。
1
细胞形态与基本特征
•革兰氏染色:革兰氏阴性。
•形态:短杆状细菌(无鞭毛,不运动)。
•氧气需求:专性厌氧菌——生长需要无氧环境。
•菌落形态:菌落多为光滑、隆起,直径约1–3mm,因沉积血红素(卟啉铁)复合物而常由边缘向中心逐渐变黑(产黑色素)。
•其他特征:不形成孢子。但细胞表面具有丰富的荚膜、多种蛋白质和脂多糖(LPS),并表达粗细两类菌毛(FimA主要菌毛、Mfa1次要菌毛)等结构。
•分类:属于拟杆菌门(Bacteroidota)卟啉单胞菌属(Porphyromonas)。
2
生长环境与营养需求
•定植:主要定植在龈下牙菌斑和牙周袋;也可在舌背、扁桃体隐窝等厌氧微环境中检出。
•环境偏好:温和条件(约37 °C、pH≈7),与人体口腔环境相似。
•主要营养来源:对铁和血红素依赖性极强,通过 HmuY 等血红素获取系统摄取血红素。
宿主蛋白/肽:降解血清白蛋白、血红蛋白、转铁蛋白及其他蛋白质,以获得碳、氮和铁。
3
人群分布
作为常驻口腔微生物群的一员,牙龈卟啉单胞菌(P.gingivalis)在健康个体与患病个体中均存在。
健康个体:P.gingivalis在健康者龈下菌斑中可检出,但丰度较低;检出率约为 10%–25%,随检测方法和人群而异。
牙周炎患者:约69%–79%的牙周炎患者可检出该菌;多项流行病学研究表明,其在慢性和侵袭性牙周炎中的检出率或菌量显著高于口腔健康者。
注:最新高分辨率测序表明,健康者与患者均可携带该菌;但高毒力株(如 W83/W50)在中重度牙周炎中显著富集,低毒或无毒力株(如 ATCC33277/381)则更普遍见于各类样本。
患病率因以下而异:
•国家和种族;
•年龄和口腔护理的可及性;
•诊断方法(培养、PCR、qPCR)。
4
代谢能力
典型的蛋白/肽发酵型厌氧菌:不能利用大多数糖类作为主要碳源;偏好利用多肽与氨基酸,尤其依赖宿主组织蛋白(胶原、纤维连接蛋白、血红蛋白等)及其他细菌代谢产物。
具有多种蛋白水解酶,可:
分解宿主组织与血浆蛋白获取营养;
释放铁、血红素等必需因子;
同时改变局部炎症和凝血环境。
例如Gingipains是由牙龈卟啉单胞菌产生的一类关键毒力因子,属于半胱氨酸蛋白酶(cysteine proteases),在牙周病及多种系统性疾病中发挥核心作用。
RgpA/RgpB——精氨酸特异性
Kgp——赖氨酸特异性
其能:
–降解宿主的结构蛋白和免疫蛋白(如白蛋白、补体组分、免疫球蛋白、细胞因子);
–释放肽和氨基酸以获取营养;
-从血红蛋白和其他血蛋白中释放血红素以获取铁;
-对组织破坏和免疫调节有重大影响。
其他营养获取酶还有二肽基肽酶IV(DPPIV):从宿主蛋白/肽中切割二肽,有助于肽的利用和毒力。
牙龈卟啉单胞菌具有专门的血红素/铁获取系统(如Hmu和Hus系统)用于捕捉和内化血红素:
首先将氧血红蛋白转化为更易受影响的高铁血红蛋白;
其次完全蛋白水解血蛋白以释放游离血红素;
最后通过特定的外膜受体和运输系统结合并引入血红素。
5
耐药性
P.gingivalis对甲硝唑、阿莫西林、四环素等常用抗菌药总体仍以敏感为主,但临床分离株中β-内酰胺类和大环内酯类耐药呈上升趋势。
注:生物膜状态可显著增强耐药表型与耐受性;“耐药并非单一基因决定,而是生态位与生理状态的产物”。
鉴于其关键性质和生物膜生活方式,机械清创加上局部/口腔卫生措施仍是基础,抗生素作为辅助而非单独治疗。
6
与其他菌群的互作
即使相对丰度较低,P.gingivalis也可通过调控宿主免疫并改变微环境,驱动群落菌群失衡。
P.gingivalis与Fusobacterium nucleatum、Prevotella intermedia、Treponema denticola等协同形成生物膜:其 gingipains 和几类外膜蛋白对于多种菌种生物膜形成至关重要。
与其他牙周病原体共聚并协同:
•齿垢密螺旋体(Treponema denticola)——形成具有增强毒力和稳定性的混合物种生物膜;
•与早期定殖者如格氏链球菌(Streptococcus gordonii)相互作用,利用特异性粘附蛋白-受体相互作用整合至现有斑块。
牙龈卟啉单胞菌(Porphyromonas gingivalis)与Tannerella forsythia和Treponema denticola可形成一种“红色复合体”。
菌群失调与生态变化:
通过降解宿主蛋白和调节炎症,牙龈卟啉单胞菌丰富了以下环境中的栖息地:
•血红素和肽,支持蛋白水解性厌氧菌生长。
•炎症性渗出物,有利于更具致病性的群体。
这导致形成促炎、破坏组织的微生物群。
口腔外的相互作用:
•肠道微生物群相互作用:实验研究表明,P.gingivalis可以定殖或通过肠道,改变肠道微生物组成和短链脂肪酸代谢,可能促成全身炎症和代谢变化。
•系统微生物组-免疫轴:由P. gingivalis引起的口腔菌群失调,是炎症介质和微生物产物的慢性来源,影响全身免疫力,并与其他黏膜微生物组(如肠道、气道)相互作用。
相互作用表:
向上滑动阅览
增强:
Bacteroidales
Bacteroides
Odoribacter
Peptococcaceae
抑制:
Bifidobacterium
Coriobacteriales
Adlercreutzia
Collinsella
Porphyromonas
Prevotella
Clostridium
Clostridiales incertae sedis
Clostridiales Family XIII. Incertae Sedis
Blautia
Coprococcus
Dorea
Lachnospiraceae
Ruminococcaceae
Ruminococcus
Dialister
Campylobacteraceae
Erysipelotrichaceae
被抑制:
Bifidobacterium
Coriobacteriales
Adlercreutzia
Collinsella
Bacteroidales
Bacteroides
Porphyromonadaceae
Odoribacter
Parabacteroides
Porphyromonas
Prevotella
Rikenellaceae
Alistipes
Turicibacter
Streptococcus
Clostridiales
Catabacteriaceae
Clostridium
Clostridiales incertae sedis
Peptoniphilus
Clostridiales Family XIII. Incertae Sedis
Lachnospiraceae
Blautia
Lachnospiraceae
Coprococcus
Dorea
Eubacterium
Lachnobacterium
Lachnospira
Roseburia
Lachnospiraceae
Peptococcaceae
Ruminococcaceae
Ruminiclostridium
Acetivibrio
Eubacterium
Faecalibacterium
Oscillospira
Ruminococcus
Acidaminococcus
Dialister
Phascolarctobacterium
Veillonella
Rubrivivax
Alcaligenaceae
Oxalobacter
Bilophila
Desulfovibrio
Campylobacteraceae
Enterobacteriaceae
Escherichia
Erysipelotrichaceae
Erysipelotrichaceae
Holdemania
Akkermansia
♥
研究发现,牙龈卟啉单胞菌(Porphyromonas gingivalis)是导致慢性牙周炎的主要病因。牙周炎是一种感染驱动的炎症性疾病,其特征是牙龈炎症和骨质流失。
注:全球有5.38亿人患有严重牙周病,其中2.76亿人失去了牙齿。随着人口增长和老龄化,这一数字预计还会上升。
牙龈卟啉单胞菌作为牙周关键病原体概述
Curtis MA,et al.J Periodontal Res.2025
◮ 牙周炎特征包括:
•牙龈发红、肿胀、流血;
•牙齿与牙龈之间的附着脱落;
•牙周韧带和牙槽骨的逐渐破坏;
•最终牙齿的活动性与脱落。
下面让我们一起进一步了解牙龈卟啉单胞菌的毒力因子、致病机制以及致病过程,重点梳理其主要毒力因子如何发挥作用,并从整体上把握其致病机制与致病过程的关键环节。
主要毒力因子
◮ 细胞表面与黏附相关因子
①菌毛(FimA主要菌毛+Mfa1次级菌毛+其他类型 )
•介导对牙面、唾液蛋白、ECM(纤维连接蛋白、层粘连蛋白)及其他细菌(如Streptococcus gordonii)的黏附与共聚集。
•不同 fimA 型别(I–V、Ib)在侵犯性、炎症诱导和骨吸收潜能上显著不同;侵袭力强的菌株(如 W83)往往携带特定 fimA 型别,并与 rgpB 基因型存在关联。
•对上皮细胞和成骨细胞的初始侵袭非常重要,但对后续抑制成骨分化和矿化作用不是必需的。
②荚膜
•多糖荚膜可抗吞噬、抗补体杀伤,包被脂多糖和表面蛋白,减弱模式识别。
•有荚膜菌株在牙周炎、菌血症模型中毒力更高,与全身炎症、心血管损伤相关。
③脂多糖
•P.gingivalis的脂多糖结构高度可塑,在 TLR2/TLR4 之间切换,可诱导低反应型或偏向 Th2/Th17 的炎症,避免有效清除。
•LPS 还影响骨代谢(促进 RANKL 表达、抑制成骨),并可在远处组织(血管、脑)诱导炎症与内皮损伤。
④外膜蛋白与血红素捕获蛋白
•HmuY、HemR、HBP35、HbR、OMP26/83 等:血红素/血红蛋白受体,是铁利用的核心。
注:HmuY蛋白是P.gingivalis特有的铁调控血红素结合蛋白,主要位于菌体表面,并可作为可溶性脂蛋白或外膜囊泡释放至环境中。
•LptO:参与 LPS 去酰化及 A‑LPS 与 CTD 蛋白分泌协调,是表面蛋白正确展示和 OMVs 形成的关键。
牙龈卟啉单胞菌的主要致病因子
编辑
doi: 10.1016/j.jmb.2021.166836.
◮ 分泌系统与外排结构
①IX 型分泌系统(T9SS)
•负责分泌并锚定一大批 CTD 蛋白,包括 gingipains、部分黏附蛋白、血红素获取蛋白等。
②外膜囊泡
•富集 gingipains、LPS、PPAD、HBP35 等毒力因子;
•体积小、易扩散,可穿透黏液和组织,既在局部牙周组织中扩散毒力,也可进入血流,参与远处器官(血管、肝、脑)的炎症和损伤。
P.gingivalis OMVs中的毒力因子及相关效应
编辑
doi.org/10.3390/app15126847
◮ 蛋白水解酶与代谢相关因子
①Gingipains(三种半胱氨酸蛋白酶)
•RgpA、RgpB(精氨酸特异)和 Kgp(赖氨酸特异),是最核心毒力因子:
•营养获取:大规模降解胶原、纤维蛋白原、白蛋白、免疫球蛋白等,释放多肽与氨基酸,同时从血红蛋白、血红素蛋白、铁蛋白中夺取 hemin/铁。
•免疫调控/免疫逃逸:切割 C3、C4、C5 生成或耗竭补体组分;剪切 CD4、CD8、CD14、TREM‑1 等免疫受体;激活或失活细胞因子(IL‑1β、IL‑6、TNF‑α、IL‑8)。
•组织破坏与骨吸收:降解基质金属蛋白酶抑制因子、激活前体 MMP;促进 RANKL 表达,诱导破骨细胞生成。
②二肽基肽酶 IV(DPPIV)及其他外肽酶
•分解宿主多肽、细菌信号肽,提供营养并调节细胞因子谱。
•DPPIV 活性与生物膜形成和牙周炎严重度正相关。
③氧化应激应答系统
•多种抗氧化酶(超氧化物歧化酶、过氧化氢酶样因子等)与调控网络,使其在充满活性氧的炎症牙周袋内仍能存活。
•抗氧化能力本身也被视为毒力决定因素之一。
致病机制:从“关键病原体”视角理解
◮ 关键病原体与多菌种协同
P.gingivalis在菌斑中的绝对丰度一般不高,却能通过毒力因子重塑宿主免疫与微环境。
主要通过:
•破坏上皮屏障(菌毛、LPS、SerB 等效应蛋白);
•调节补体–TLR 交叉通路(C5aR–TLR2 失衡、CR3 介导“伪吞噬”);
•提供丰富蛋白底物与使整个群落从“相对共生”转向“蛋白分解‑致炎”的菌群失衡(dysbiosis)。
•与“红色复合体”伙伴 T. denticola、T. forsythia 以及 Fusobacterium nucleatum、Streptococcus gordonii 等协同,相互黏附、交叉供养(代谢产物共享);共同构建耐药、耐清除的复杂生物膜。
◮ 免疫逃逸与免疫重编程
①先天免疫层面
•多种脂A异构体改变 TLR2/TLR4 信号,诱导偏低IL‑12产生和异常NF‑κB激活,削弱Th1清除反应。
•趋化因子瘫痪:通过降解 IL‑8 等趋化因子,削弱中性粒细胞募集。
②获得性免疫层面
•Protease 切割 CD4/CD8/TCR 及共刺激分子,抑制 T 细胞活化;
•PPAD 诱导瓜氨酸化新表位,驱动异常 B/T 细胞反应;
•在某些模型中,可减少调节性 T 细胞或诱导“致病性 Treg”亚群。
③细胞侵袭与细胞内生存
•通过菌毛、胶原黏附蛋白、SerB 等进入上皮细胞、内皮细胞、成骨细胞、巨噬细胞;
•高度利用宿主自噬途径作为“运输高速公路”,在自噬体/溶酶体中长期存活;
•改变宿主细胞骨架与紧密连接,破坏屏障并利于自身传播。
◮ 铁依赖与代谢优势
•严格依赖氯化血红素(Hemin)/铁生长,通过:
表面 hemin 受体(HmuR / HemR / HBP35 / IhtB 等);
Gingipain 和 DPPIV 等蛋白酶自宿主血红蛋白、hemopexin、触珠蛋白、转铁蛋白中释放 hemin;
IX 型分泌系统分泌血素样蛋白(HmuY)和 OMVs 携带 hemin。
•在铁缺环境(健康牙周袋)下具有明显优势,可储存表面黑色素,兼具营养库与抗氧化“缓冲层”的功能。
◮ 组织破坏与骨代谢失衡
本质是由 失衡炎症 + 破骨/成骨比失衡 驱动:
•Gingipain、LPS 及 OMVs 激活 RANKL‑RANK 轴,上调 RANKL、下调 OPG;
•诱导多种炎症因子(TNF‑α、IL‑1β、IL‑6、IL‑17),促进破骨细胞分化;
•降解骨基质与 ECM,并抑制成骨细胞功能和矿化,导致牙槽骨吸收与附着丧失。
致病过程(以牙周炎为主线)
一般可将牙龈卟啉单胞菌(Porphyromonas gingivalis)相关牙周炎发展分为四个阶段:
阶段1:定植与生物膜初建
①环境准备
•牙面先由需氧/兼性革兰阳性球菌(链球菌等)形成早期生物膜;
•牙龈炎形成后,龈沟加深、氧压下降,蛋白质/铁丰富,为P.gingivalis和其它厌氧菌提供生态位。
②进入与黏附
•依靠 fimbriae、Mfa1、HagA/HagB 等凝集素结合唾液受体、ECM、早期定植菌表面蛋白(如 S. gordonii GAPDH);
•借助脂多糖、外膜蛋白与宿主受体(整合素、TLR、CXCR4 等)相互作用加强黏附。
阶段2:微生态重塑与免疫失衡
①生物膜成熟与菌群失衡
•与T. denticola,T. forsythia, F. nucleatum 等协同,构成“红色复合体”和复杂多菌种生物膜;
•Gingipains/DPPIV 分解唾液蛋白与炎性渗出液,为整个群落提供氨基酸与肽类碳氮源。
②免疫重编程
•脂多糖结构变化、补体–TLR 信号交叉、趋化因子瘫痪 → 局部防御减弱而炎症持续;
•中性粒细胞、大量炎症细胞浸润但杀菌效率低,形成典型的 “低效炎症+高组织破坏” 状态。
阶段3:组织破坏与牙槽骨吸收
①软组织破坏
•Gingipains 和其他蛋白酶广泛降解胶原、纤维连接蛋白、基底膜成分;
•SerB 等效应蛋白通过胞内信号干扰上皮屏障、诱导凋亡或坏死。
②骨破坏与牙周袋形成
•炎症介质(PGE₂、IL‑1β、TNF‑α、IL‑6、IL‑17)+ RANKL/OPG 比值上升 → 破骨细胞活化;
•牙槽骨逐渐吸收,临床表现为出血、附着丧失、牙齿松动。
③持续慢性感染
P.gingivalis能侵入牙周组织细胞(上皮、成纤维细胞、内皮细胞、成骨细胞)及局部淋巴结,在细胞内长期存活,形成难以彻底清除的“储备库”。
阶段4:扩散与系统性影响
①外膜囊泡入血
•咀嚼、刷牙、牙周治疗等操作可造成P.gingivalis进入循环系统或其他组织。
•外膜囊泡(OMVs)更易进入血流并到达远处器官。
②系统炎症与靶器官损伤
•在动脉斑块、胰腺、肝脏、胎盘、脑组织中均可检出P.gingivalis DNA/抗原或 gingipains;
•通过上述机制参与心血管疾病、糖尿病、类风湿关节炎、神经退行性病变等的发生与进展。
牙龈卟啉单胞菌作为牙周炎发生与进展中的关键致病菌,即使在菌群中相对丰度不高,也能凭借多样的毒力因子与免疫调控能力,改变龈下微环境并推动菌群失衡,从而放大炎症反应并加速牙周组织破坏。
现有研究还提示其不同毒力株在病变人群中呈现差异性富集,且在生物膜状态下更易表现出更强的耐受与耐药表型,增加临床控制难度。因此,围绕牙龈卟啉单胞菌的精准检测、分型评估与靶向干预,对于牙周炎的早期预警、个体化治疗与长期维持具有重要意义。
案例分享
基本情况(主要诉求):口臭,牙周病,胃食管反流。
检测结果要点,如下图:
编辑
从图中可以看出,检测者口腔中的相关病原菌水平出现严重超标的情况,其中以牙龈卟啉单胞菌(P.gingivalis)最为突出,其检出量相较参考范围高出约39倍,提示该菌丰度异常升高。
编辑
编辑
•与牙周病(核心主线)
P.gingivalis是经典牙周致病菌之一。报告中牙周炎高风险与P.gingivalis显著超标一致,提示口腔内可能存在更活跃的炎症微生态环境与牙龈下菌斑问题。
•与口臭(症状表现)
口臭常与牙周袋、舌苔及厌氧菌代谢产生的口腔挥发性硫化物(VSC)增多相关。该报告在“口臭”模块中同时出现P.gingivalis明显超标及多种口臭相关菌升高,形成“菌群—代谢产物—异味”的同向线索:牙周炎越活跃、厌氧菌负荷越高,口臭越容易反复。
•与胃食管反流
从“过程”角度看:反流可改变口腔环境(酸暴露、口干、菌斑生态位变化),使牙周相关厌氧菌更容易在不利环境下获得优势;反过来,牙周感染灶与炎症负荷升高也可能让上消化道不适更难“稳定下来”。因此,报告提示的P.gingivalis高丰度更像是一个“口腔慢性炎症与微生态失衡”的信号,可能与胃食管反流形成双向叠加的困扰体验。
由此可进一步得知,口腔微生物状态是否健康不仅影响口腔本身,也与全身健康状况存在密切关联。
♥
越来越多证据表明,牙龈卟啉单胞菌(P.gingivalis)与多种全身性疾病相关。牙周炎不仅是牙齿脱落的重要原因,还与心血管疾病、糖尿病、阿尔茨海默病及类风湿性关节炎等疾病有关。
牙龈卟啉单胞菌传播的机制
口腔病原体牙龈卟啉单胞菌除致牙周炎外,还与多种全身疾病相关。其由口腔播散至其他器官主要有四种途径:
(1)分泌蛋白水解酶降解细胞—基质黏附分子,破坏黏膜屏障并促其侵入;
(2)经转胞作用进入细胞并跨层转移,逐步深入组织;
(3)被吞噬细胞摄取后随血流转运并在血中释放;(4)附着菌丝并随其穿透黏膜,进入更深结构。
牙龈卟啉单胞菌入侵全身的策略
编辑
doi: 10.3390/pathogens9110944.
1
心血管疾病
牙周炎患者发生冠心病的风险更高
研究显示,患有牙周炎的人患冠心病的风险显著高于无牙周炎者。2023年的一项荟萃分析证实,牙周病与心血管不良结局(如心肌梗死和中风)在不同人群和性别中存在一致关联。
编辑
同样,研究报告称,刷牙、清创或刮治等操作可能促使口腔病原体及其毒力因子进入血流。另有证据显示,可在动脉粥样硬化斑块中检出牙龈卟啉单胞菌,且牙周细菌在血液或血管病变内的原位存在与动脉瘤风险升高相关。
最新研究还表明,牙周病与冠状动脉疾病、中风及心力衰竭风险显著增加相关,且在男女中均一致观察到。
牙龈卟啉单胞菌会促进动脉粥样硬化发展
文献指出牙周炎可能影响心血管疾病发展的两种主要机制:直接机制涉及细菌侵入血管,而间接机制则通过激活宿主过度的炎症反应,进而影响系统性疾病的发生。
P.gingivalis诱导的加速动脉粥样硬化刺激
编辑
doi: 10.3390/pathogens9110944.
细菌抗原与宿主细胞的相互作用可以引发局部和全身免疫反应。牙龈卟啉单胞菌已被证明会侵入内皮细胞,诱导功能障碍,并触发促动脉粥样硬化反应,促进动脉粥样硬化病灶的发展和进展。
2
糖尿病
大量文献已证实糖尿病与牙周病存在生物学关联,且牙周炎可影响包括糖尿病在内的多种全身性疾病的发病机制。
牙周炎损害血糖控制、促进糖尿病
牙周炎与糖尿病呈双向交互关系:糖尿病促进牙周炎的发生和进展,而牙周炎则损害血糖控制,并促成糖尿病并发症的发展。糖尿病患者通常表现出比非糖尿病患者更严重的临床牙周炎症表现,牙周破坏的严重程度与全身性并发症的存在、血糖控制程度及糖尿病类型相关。
牙周感染的微生物活动是牙周炎与糖尿病双向关联的重要基础之一。牙周炎的高炎症状态可显著增加活性氧(ROS),并与高级糖基化终产物(AGEs)形成复杂互作;AGEs在高血糖与氧化条件下积累,进一步加剧氧化应激与炎症,损害牙周及全身健康。
牙周细菌诱发的感染产生脂多糖(LPS),促使炎症细胞因子升高并募集免疫细胞,从而加重糖尿病;而糖尿病的高血糖环境又利于致病菌生长,推动菌群失调。
炎症性细胞因子增多还会削弱血糖控制。牙周组织破坏始于牙龈龈沟液中升高的细菌激活炎症细胞因子,继而导致结缔组织与牙槽骨分解。
牙周炎与糖尿病之间的双向关系
编辑
doi.org/10.3390/app15126847
最新研究表明,糖尿病控制不佳的人群患牙周炎的风险显著更高,强调了有效血糖管理在牙周健康中的重要性。相反,牙周炎与糖尿病患者代谢控制恶化有关,突显了需要综合管理策略以同时应对这两种疾病。
3
阿尔茨海默病
阿尔茨海默病(AD)是一种累及全球数百万人的神经退行性疾病,随着寿命延长与人口老龄化,其患病率快速上升。有研究人员发现,牙周病暴露与AD风险增加1.7倍相关。
注:AD以神经元进行性丧失为特征,导致记忆、语言与认知功能逐步衰退,晚期可致死亡(阿尔茨海默病协会,2016)。
牙周病原体通过血流可进入大脑并释放毒素
牙龈卟啉单胞菌通路至大脑
编辑
Huang Z,et al.Front Immunol.2025
科学证据表明,阿尔茨海默病/痴呆患者常伴口腔健康受损,因而更易发生慢性口腔疾病。牙周病原体可侵入牙周袋上皮并进入血流,在循环中释放内毒素和外毒素,将感染扩散至包括大脑在内的多个部位;在AD患者脑组织中已检出大量脂多糖(LPS)。
牙周病(PD)与AD的相互作用可能通过多环节过程诱发神经元退变:口腔菌群失调促使病原体增殖并侵入牙周组织,继而入血;病原体及其毒性分子(如LPS)与小胶质细胞的Toll样受体2/4(TLR2/4)结合,诱导细胞因子和炎症介质释放。
炎症反应进一步促进神经元产生淀粉样前体蛋白(APP),并通过激活β、γ分泌酶增加淀粉样蛋白β(Aβ)分泌,尤其是Aβ42单体和sAPPβ,导致细胞外沉积及AICD生成;Aβ随后聚集为寡聚体、原纤维/纤维,最终形成淀粉样斑块。
AD患者在脑脊液和口腔中检测到牙龈卟啉单胞菌
编辑
doi: 10.1126/sciadv.aau3333.
牙龈卟啉单胞菌是Aβ斑块形成的重要风险因素
这些斑块可被小胶质细胞膜上的髓系细胞触发受体2(TREM2)识别,进而引发进一步的炎症反应并促进Aβ生成。与此同时,功能失调的神经元中tau蛋白磷酸化(p-tau)增加,形成神经纤维缠结。慢性牙周炎(CP)及牙龈卟啉单胞菌感染已被认为是Aβ斑块、痴呆和阿尔茨海默病发生的重要风险因素。
有研究人员提出,牙龈卟啉单胞菌通过分泌牙龈蛋白酶(gingipains)介导神经损伤,参与AD发病机制;其研究在AD大脑中检测到显著的牙龈蛋白酶免疫反应性(IR),并在生前确诊AD患者的大脑与脑脊液(CSF)中鉴定出P.gingivalis DNA,提示其DNA或可作为鉴别诊断标志。
研究指出,过度神经炎症可导致突触蛋白减少与记忆丧失,并对牙周炎中P.gingivalis-LPS介导的炎症通路提供机制性解释。近期研究进一步表明,牙周病原体可通过调控小胶质细胞激活加重神经炎症,可能加速AD的神经退行过程。
此外,纵向队列研究发现,有效牙周治疗与AD高风险人群认知衰退减缓相关,提示口腔健康干预或有助于AD管理。
4
其他神经退行性疾病
除阿尔茨海默病外,研究还发现牙龈卟啉单胞菌与帕金森病等其他神经退行性疾病相关。
牙龈卟啉单胞菌与神经退行性疾病
编辑
Huang Z,et al.Front Immunol.2025
牙周炎与帕金森病(PD)风险相关
流行病学与机制线索提示P. gingivalis可能通过氧化应激与神经炎症影响帕金森病(PD)发生发展。
在PD患者血液中检测到 P.gingivalis 的主要毒力因子(如 gingipain R1、P.g-LPS)的报道,并有研究提示 gingipains 可能在黑质相关区域出现沉积。
相较 AD,P. gingivalis 通过“氧化应激直接驱动 PD”的直接证据仍不足,但其脂多糖诱导线粒体功能障碍与神经炎症的结果与 PD 病理环节相契合。
多发性硬化(MS)
直接发表证据有限;但动物模型中口腔感染P.gingivalis 可加重自身免疫性脑脊髓炎样病理,提示外周炎症/感染可放大神经炎症与脱髓鞘过程。
5
溃疡性结肠炎
编辑
研究发现,溃疡性结肠炎(UC)患者较健康对照牙周炎发生率更高、牙周袋更深、缺牙更多。
口服P.gingivalis会加重溃疡性结肠炎(小鼠)
设计:C57BL/6 小鼠连续 40 天每周 2 次灌胃(生理盐水或活菌 P. gingivalis W83 等),后 10 天给予 DSS 诱导结肠炎。
结果:与单纯 DSS 相比,P. gingivalis 灌胃组出现更严重的结肠炎表型:
–DAI(疾病活动指数)更高;
–结肠更短
–组织学损伤更重(深溃疡、上皮/腺体脱落、基底膜破碎、炎性细胞浸润等)。
牙龈卟啉单胞菌会加重溃疡性结肠炎
编辑
doi: 10.1038/s41368-021-00136-2.
P.gingivalis可能加重已有炎症,并非诱导发病
研究讨论引用“口源菌到达肠道”的模型:口腔炎症(牙周炎)增加口源致病菌负荷;肠道已有炎症会破坏菌群稳态,使口源菌更易在肠道定植并取代常驻菌;两者协同使口源菌更可能通过胃酸屏障并在肠道扩增,从而加剧既有肠炎(更倾向于“加重已有炎症”,而非诱发健康肠道发病)。
P.gingivalis 部分通过诱导异常免疫反应、提高 Th17/Treg 比值,从而加重 UC 炎症。
6
类风湿性关节炎
类风湿性关节炎与牙周病共享多种病理机制,包括相似的炎症细胞参与、血清及局部细胞因子谱的平行变化,以及基质金属蛋白酶(MMPs)等组织降解介质的激活。两者亦均以破骨细胞介导的骨吸收为特征,造成显著骨损伤。
牙龈卟啉单胞菌能表达PAD,这在类风湿关节炎中起重要作用
类风湿关节炎(RA)发病机制的关键环节是瓜氨酸化,即由肽基精氨酸去亚胺酶(PAD)介导的翻译后修饰,将精氨酸转化为瓜氨酸。
注:PAD由多种免疫细胞(如T/B淋巴细胞、中性粒细胞、单核细胞和巨噬细胞)表达。
过度瓜氨酸化可形成自身抗原,诱导自身抗体生成,尤其是抗环瓜氨酸肽(anti-CCP)抗体,这是RA发病的核心。瓜氨酸化蛋白的积累进一步放大自身免疫反应,加重炎症与组织破坏。
迄今牙龈卟啉单胞菌是唯一已知可表达肽基精氨酸脱亚胺酶(PPAD)的微生物,该细菌酶与人类PAD同源。RA患者口腔中P.gingivalis的存在与抗CCP抗体高度相关,提示其可能在RA发病中具有关键作用。
假设牙龈卟啉单胞菌促进了瓜氨酸化蛋白在口腔内的积累,通过异常免疫反应激活产生自身抗体。特别是,类风湿关节炎患者对瓜氨酸化蛋白的免疫耐受降低可能促进这些自身抗体的生成,进而加重疾病的系统性炎症负担。
此外,瓜氨酸化蛋白的产生升高与更严重的疾病表现有关,包括关节侵蚀的快速进展。因此,抗CCP抗体的存在已被证明与类风湿性关节炎患者肺泡骨吸收增加相关,进一步强调了牙周病与类风湿关节炎严重程度之间的相互关联。
近期研究通过识别口腔微生物组中可能与牙龈卟啉单胞菌协同作用,加重类风湿关节炎的瓜氨酸化和系统性自身免疫,进一步扩大了这一视野。
7
慢性阻塞性肺病
慢性阻塞性肺病(COPD)是一组以气道气流受限为特征的疾病,包括慢性支气管炎和肺气肿。
牙周炎与慢性阻塞性肺病正相关
研究显示,牙周炎与COPD正相关,牙周治疗可改善肺功能并降低急性加重频率。基于16S rDNA的宏基因组分析在重症急性COPD患者气管抽吸物中检出P.gingivalis,提示其可能参与发病。
唾液中与该菌相关的蛋白酶等酶可改变黏膜表面黏附受体并破坏/降解唾液膜,从而促进呼吸道病原体在呼吸上皮定殖。因此,牙龈卟啉单胞菌可能通过促进呼吸道病原体定植推动COPD进展。
牙龈卟啉单胞菌在COPD发展过程中的影响
编辑
doi: 10.1038/s41368-025-00397-1.
8
不良妊娠结局
不良妊娠结局(APO)是指妊娠、分娩或产后发生的孕产妇、胎儿或新生儿并发症。流行病学证据一致表明牙周炎与APO正相关。
P.gingivalis的DNA可在胎盘、脐带中检出
牙龈卟啉单胞菌(P.gingivalis)的DNA和抗原也可在胎盘、脐带及羊水中检出,其在胎盘或脐带中的存在与早产(PB)、子痫前期及妊娠期高血压等并发症相关,提示其可通过侵入并损伤子宫-胎盘组织参与APO。
多种啮齿动物模型进一步证实,P.gingivalis感染可诱发子宫-胎盘病变(如子宫内膜动脉炎、轻度绒毛膜羊膜炎及伴胎盘结构障碍的子宫胎盘出血),并导致胎儿生长受限(FGR)、低出生体重(LBW)和早产等不良结局。
P.gingivalis通过免疫失衡影响FGR与早产
在孕鼠模型中,感染P.gingivalis可触发胎儿特异性胎盘免疫反应,提高胎盘Th1/Th2细胞因子比值(IFN-γ、IL-2、IL-12升高,IL-4、IL-10降低),与胎儿生长受限(FGR)相关;同时可增强母体免疫反应并加重FGR,表现为母体血清TNF-α升高、IL-10降低。此外,P. gingivalis LPS可通过诱导胎盘半乳糖凝集素-3并上调TNF-α、IL-8和环氧合酶2等炎症因子,直接或间接诱发早产。
体外研究显示,该菌可侵入人绒毛外滋养层细胞,诱导G1期阻滞与凋亡,可能涉及ERK1/2及DNA损伤反应通路;p53/p38与JNK介导的HSP27/p21通路等复杂信号网络亦可能参与其中。此外还提出其可通过侵入与免疫逃逸在子宫-胎盘组织持续存活,促发多微生物失调并与共生菌协同增加母胎界面微生物负荷,上调CRP、戊曲素3等急性期蛋白,并伴随活性氧过量、胎儿肾上腺皮质激素增加及胎儿应激等改变。
♥
鉴于牙龈卟啉单胞菌(Porphyromonas gingivalis)与牙周炎及多种疾病之间存在密切联系,对该菌进行控制或干预,被视为一种切实可行的疾病管理策略,并为相关疾病的防治提供新的切入点。
▸ 经典临床策略:控制菌斑与靶向抗菌
•机械清创 + 抗生素/抗菌剂:龈下刮治联合阿莫西林、甲硝唑、阿奇霉素等可降低P.gingivalis负荷,但临床获益并非总与菌量下降成正比,提示疾病是多因素的。
•氯己定及光动力疗法:可减少P.gingivalis计数和炎症,被认为是有效辅助方法。
▸ 日常居家护理:减少牙菌斑
•刷牙:每天两次用含氟牙膏刷牙和牙缝清洁(牙线、牙间刷)会破坏牙龈卟啉单胞菌定殖所需的牙菌斑基质。
•使用漱口水:白藜芦醇漱口水在与牙龈卟啉单胞菌相关病例中,配合使用时显著改善了口臭和临床指标。
▸ 饮食:减少P.gingivalis定植
•多酚(绿茶、蔓越莓、其他植物来源):绿茶、多酚和蔓越莓含有原花青素,可以抑制牙龈卟啉单胞菌的致病因子,如牙龈炎和生物膜形成。
•地中海风格、富含油酸的饮食:在老年小鼠中,富含油酸(典型橄榄油)的饮食相比富含棕榈酸的饮食,减少了牙龈卟啉单胞感染的全身性炎症后果,并减轻了骨质流失。支持采用地中海饮食(橄榄油、坚果、蔬菜、鱼类)来缓冲系统性影响。
•天然多酚/植物化学物:姜黄素、白藜芦醇、槲皮素等可抑制生长、黏附和生物膜,并显著下调黏附素和gingipain等毒力基因。
▸ 益生菌与疫苗
•Lactobacillus casei DS31:体外实验中,DS31细菌或游离上清液显著抑制了牙龈卟啉单胞菌生物膜的形成,并帮助消除了现有的生物膜;在牙周炎模型中,DS31缓解了炎症和组织损伤。
•其他乳杆菌和双歧杆菌菌株:系统综述显示,多种乳杆菌菌株可以减少P.gingivalis数量或干扰其粘连,尽管临床数据仍有限;双歧杆菌附着于龈下生物膜,并在体外减少牙龈卟啉单胞菌的生长。不过不同乳杆菌株在抑制P.gingivalis和炎症上具有菌株特异性。
•疫苗与免疫增强:以P.gingivalis纤维蛋白、外膜蛋白、热休克蛋白及gingipain为抗原的黏膜疫苗在动物实验中能阻断P.gingivalis介导的破坏性免疫反应,被视为长期预防的重要方向。
▸ 抑毒力与生物膜的创新策略
•纳米递药与植物外泌体:
抗体修饰脂质体包载人参皂苷Rh2可定向清除P.gingivalis,维持口腔菌群稳态。
姜来源外泌体样纳米颗粒被P. gingivalis特异摄取,可干扰多种毒力因子并在小鼠中减轻牙周炎。
•群体感应/酶学“抗毒力”药物:
AHL内酯酶Est816通过“干扰群体感应”显著破坏P.gingivalis生物膜、下调毒力基因并降低炎症,无明显细胞毒性。
针对P.gingivalis谷氨酰环化酶(PgQC)的小分子S‑0636可显著降低gingipain活性和上皮侵袭性,且不杀菌、不扰乱共生菌,也未见耐药产生。
直接gingipain抑制剂在阿尔茨海默病模型中可减少脑内P. gingivalis负荷、Aβ生成和神经炎症,提示有望降低其全身危害。
♥
基于上述认识,如何检测自身P.gingivalis的水平与变化,并据此进行针对性的调控或干预,以降低或减轻其带来的危害,已逐渐成为当前的重要研究方向与关注重点。现有策略主要分四类:
一、口腔卫生管理与牙周基础治疗以降低生物负荷;
二、必要时联合抗生素控制感染;
三、开发靶向关键毒力因子(尤其是gingipains)的小分子抑制剂以削弱致病力;
四、探索基于特定抗原结构的免疫预防与疫苗方案。
主要参考文献
How KY, Song KP, Chan KG. Porphyromonas gingivalis: An Overview of Periodontopathic Pathogen below the Gum Line. Front Microbiol. 2016 Feb 9;7:53.
Mysak J, Podzimek S, Sommerova P, Lyuya-Mi Y, Bartova J, Janatova T, Prochazkova J, Duskova J. Porphyromonas gingivalis: major periodontopathic pathogen overview. J Immunol Res. 2014;2014:476068.
Xu W, Zhou W, Wang H, Liang S. Roles of Porphyromonas gingivalis and its virulence factors in periodontitis. Adv Protein Chem Struct Biol. 2020;120:45-84.
Curtis MA, Garnett JA, Darveau RP. The Keystone-Pathogen Hypothesis Updated: The Role of Porphyromonas gingivalis in Periodontitis. J Periodontal Res. 2025 Oct 31.
Lunar Silva I, Cascales E. Molecular Strategies Underlying Porphyromonas gingivalis Virulence. J Mol Biol. 2021 Apr 2;433(7):166836.
Lv C, Shi K, Guo Z, Luo P, Wu Z, Yu P. Porphyromonas gingivalis-derived outer membrane vesicles travel from oral to distant organs via blood circulation in a time-dependent manner. BMC Oral Health. 2026 Feb 27.
Mei F, Xie M, Huang X, Long Y, Lu X, Wang X, Chen L. Porphyromonas gingivalis and Its Systemic Impact: Current Status. Pathogens. 2020 Nov 13;9(11):944.
Murugaiyan V, Utreja S, Hovey KM, Sun Y, LaMonte MJ, Wactawski-Wende J, Diaz PI, Buck MJ. Defining Porphyromonas gingivalis strains associated with periodontal disease. Sci Rep. 2024 Mar 14;14(1):6222.
Dominy SS, Lynch C, Ermini F, Benedyk M, Marczyk A, Konradi A, Nguyen M, Haditsch U, Raha D, Griffin C, Holsinger LJ, Arastu-Kapur S, Kaba S, Lee A, Ryder MI, Potempa B, Mydel P, Hellvard A, Adamowicz K, Hasturk H, Walker GD, Reynolds EC, Faull RLM, Curtis MA, Dragunow M, Potempa J. Porphyromonas gingivalis in Alzheimer’s disease brains: Evidence for disease causation and treatment with small-molecule inhibitors. Sci Adv. 2019 Jan 23;5(1):eaau3333.
Zhang L, Tian H, Ma Y, Xu J, Guo C, Wang Z, Ma J. Periodontitis pathogen Porphyromonas gingivalis promotes chronic obstructive pulmonary disease via affecting neutrophils chemotaxis and function. Int J Oral Sci. 2026 Jan 9;18(1):4.
Olczak T, Simpson W, Liu X, Genco CA. Iron and heme utilization in Porphyromonas gingivalis. FEMS Microbiol Rev. 2005 Jan;29(1):119-44.
Huang Z, Hao M, Shi N, Wang X, Yuan L, Yuan H, Wang X. Porphyromonas gingivalis: a potential trigger of neurodegenerative disease. Front Immunol. 2025 Feb 14;16:1482033.
Zhao X, Liu J, Zhang C, Yu N, Lu Z, Zhang S, Li Y, Li Q, Liu J, Liu D, Pan Y. Porphyromonas gingivalis exacerbates ulcerative colitis via Porphyromonas gingivalis peptidylarginine deiminase. Int J Oral Sci. 2021 Sep 30;13(1):31.