-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
骨关节炎
骨关节炎常被形容为关节“用久了、磨坏了”。但如果它只是软骨被动磨损,就很难解释:
为什么同龄人的关节状况差异明显?
为什么影像上的损伤程度与疼痛并不总是一致?
肥胖带来的影响,又是否仅仅来自额外的关节负重?
这些问题提示我们,骨关节炎并非单纯的软骨退化,而是涉及软骨、滑膜、骨和免疫代谢环境的全关节疾病。近年来,一条看似离膝关节很远的线索受到关注:肠道菌群。菌群及其代谢产物能够影响肠道屏障、全身代谢和免疫炎症状态,进而可能参与关节疼痛与组织变化。
从链球菌属、Roseburia、脱硫弧菌等菌群的关联研究,到“菌-代谢物-关节”通路的探索,肠道菌群与骨关节炎之间的联系正变得更具体和可参考。
本文将梳理肠道菌群、微生物代谢物与骨关节炎之间的研究进展,并讨论饮食、运动、体重管理和微生态调节可能带来的启示。
本文目录
01 认识骨关节炎
骨关节炎通常是什么感觉? 哪些人更容易发生骨关节炎? 为什么不能只用“磨损”,来解释骨关节炎?
02 从肠道菌群失衡到关节损伤:肠-关节轴如何运作?
骨关节炎患者的肠道菌群发生了什么变化
肠道屏障受损:肠道里炎症信号如何进入循环?
菌群代谢物:进入全身循环的化学信号
免疫系统:菌群信号如何放大炎症
关节组织:炎症最终作用在哪里?
疼痛:为什么“片子不严重,却很疼”?
细菌细胞外囊泡:正被关注的新型信号载体
03 骨关节炎与全身健康——不只是关节的问题
肥胖与代谢综合征:不仅是膝盖承受得更多
糖尿病:高血糖也会影响关节
衰老与肌少症:年龄增加的不只是关节磨损
睡眠、压力、焦虑、抑郁:越疼越睡不好
肝脏和肾脏:远离关节,也参与代谢网络
口腔健康:牙周炎也可能和骨关节炎有关?
04 骨关节炎的相关干预措施
饮食 | 益生菌 | 益生元| 天然活性物质 |
后生元和菌群代谢物 | FMT |
下一代微生态治疗 | 运动 | 睡眠和压力管理
05 结语
骨关节炎是最常见的慢性关节疾病之一,也是导致中老年人关节疼痛、活动受限和生活质量下降的重要原因。
2020年全球疾病负担相关数据估计,全球约有5.95亿人受到骨关节炎影响,约占全球人口的7.6%。
骨关节炎可以发生在多个关节,其中以膝、髋、手部关节较为常见。
编辑
骨关节炎通常是什么感觉?
疼痛,是骨关节炎最常见也最困扰患者的症状。
–有些人平时感觉不明显,一走多了就疼。
逛街时间长一点、出去旅行走一天,或者连续做了一些家务,膝盖开始酸痛,休息后又会缓解一些。
–有些人的痛主要出现在上下楼、蹲起或从椅子上站起来的时候。
平地走路还可以,但一遇到需要屈膝和发力的动作,关节就开始不舒服。
–有些人最明显的感觉不是疼,而是关节发紧、不灵活。
比如坐久以后站起来,最开始几步感觉膝盖有些僵,需要活动一会儿才能逐渐顺畅。
随着疾病进展,症状可能从偶尔出现逐渐变得频繁。原本只是走远路不舒服,后来可能变成上下楼困难、蹲不下去,甚至日常行走距离也开始受到限制。
部分人还会出现关节肿胀、发紧、活动时有摩擦感或响声。这也提示,骨关节炎是整个关节内部的结构和组织状态都可能受到影响。
不同关节受累时,日常感受也会有所不同。
如果是膝关节:影响行走、上下楼和蹲起;
如果是髋关节:影响走路和髋部活动;
如果是手部关节,则可能在拿东西、拧瓶盖、做精细动作时感觉疼痛或不方便。
哪些人更容易发生骨关节炎?
骨关节炎通常不是由某一个单独因素造成的。目前比较明确的相关因素包括年龄增长、既往关节损伤、肥胖、遗传易感性以及长期异常机械负荷等;炎症和代谢异常也越来越受到关注。
○ 年龄
年龄增长是骨关节炎最重要的风险背景之一。随年龄增加,软骨修复能力下降、细胞衰老及线粒体功能障碍增加,关节更易受损。
注:年龄增加的是风险,而不是一个必然结果。同样是六七十岁,有的人关节功能保持得很好,有的人则已经出现明显疼痛和活动障碍。
○ 性别与绝经状态
女性患骨关节炎的风险通常高于男性,尤其是膝和手骨关节炎;髋骨关节炎的男女差异较小。
○ 遗传与家族史
骨关节炎具有一定遗传倾向,髋、膝、手和脊柱骨关节炎均可有较高遗传度。与软骨、胶原和骨代谢相关的多个基因可能参与发病。
○ 既往关节损伤
曾经发生过明显的关节创伤,也会增加之后发生骨关节炎的风险。
尤其是膝关节受到损伤后,关节内部原有的结构和受力状态可能发生变化。随着时间推移,这种影响可能逐渐表现出来。
○ 长期异常负荷
关节需要承受负荷,但长期处于异常受力状态,同样可能增加关节组织损伤。
○ 肥胖
最容易理解的一点就是,体重增加意味着关节承受的机械负荷随之增加。
不过,近年来大量研究发现,肥胖常常同时伴随一些全身性的生物学变化(这一部分我们会在后面的章节单独展开)。
○ 遗传因素
即使年龄、体重和生活环境相似,不同人对关节损伤和退变的易感程度仍然可能不同。现有研究将遗传、年龄和环境因素的共同作用视为骨关节炎发生发展的重要背景。
○ 肠道菌群
部分骨关节炎危险因素本身也与肠道菌群变化有关。比如,肥胖、衰老、高脂低纤维饮食、代谢异常以及长期压力,都可能影响肠道菌群组成、肠屏障和微生物代谢功能。
这意味着,一些传统风险因素可能不仅通过机械负荷或局部损伤影响关节,也可能通过“肠道—代谢—免疫”这条路径参与骨关节炎。
注:这部分内容会在后面章节详细展开。
为什么不能只用磨损,来解释骨关节炎?
机械负荷和关节损伤是骨关节炎的重要因素,但关节并不是一块被动磨损的材料。随着疾病进展,变化会同时涉及软骨、滑膜、软骨下骨和关节周围组织。
当关节长期承受异常应力或受到损伤后,软骨细胞的代谢和修复能力会发生变化,细胞外基质的分解逐渐超过合成;同时,滑膜炎症和软骨下骨重塑又会进一步改变局部环境,使损伤持续放大。IL-1β、IL-6、TNF-α等炎症介质以及氧化应激,也会参与这一过程。
因此,骨关节炎是否持续进展,不仅取决于最初受到多大的机械损伤,也取决于关节长期处在什么样的炎症和代谢环境中。
近年来,研究者开始进一步关注一个可能影响这种环境的远端因素——肠道菌群。
肠道和膝关节相隔很远,一个负责消化吸收,一个负责支撑和运动,看起来似乎没有太大关系。
但随着研究深入,人们发现肠道中的大量微生物,会参与人体的营养代谢、免疫调节、肠道屏障维护,还能产生多种具有生物活性的代谢物。
目前所谓的“肠-关节轴”,更接近一个连续的生物学过程:肠道微生态改变以后,肠屏障、微生物代谢物和免疫调节随之变化,这些信号进入全身循环,再作用于滑膜、软骨、软骨下骨以及疼痛相关的神经系统。
骨关节炎患者的肠道菌群发生了什么变化
多项人体研究发现,骨关节炎患者与健康人之间存在菌群组成和功能上的差异。
Streptococcus:与关节疼痛和炎症相关
编辑
2019年一项发表在 Nature Communications 的人群研究分析了Rotterdam Study III中的 1,427名受试者,并结合独立队列进行验证。研究发现,肠道中链球菌属(Streptococcus)相对丰度越高,膝、髋关节骨关节炎患者的WOMAC疼痛评分越高,而这一关联与局部关节炎症有关。
这项研究的重要意义在于,它把肠道微生物特征与骨关节炎最直观的临床表现之一——关节疼痛联系了起来。
Bilophila、Desulfovibrio 增加, Roseburia 减少
编辑
2021年,发表在 Arthritis & Rheumatology 的研究一项基于1,388 名社区中老年人的研究进一步观察了症状性手骨关节炎与肠道菌群之间的关系。
与无症状手骨关节炎人群相比,症状性手骨关节炎患者肠道中Bilophila和Desulfovibrio相对丰度升高,而Roseburia降低。
其中,Roseburia是肠道中重要的产丁酸菌之一;而Bilophila、Desulfovibrio则常与胆汁酸环境、硫代谢以及炎症状态联系在一起。
在更高的分类层级上,还表现为Desulfovibrionaceae等增加、Lachnospiraceae减少,提示骨关节炎相关菌群变化可能同时涉及促炎环境和有益代谢功能的下降。
其中Roseburia是较典型的产丁酸菌,因此这种变化也提示,骨关节炎相关菌群失衡可能同时伴随短链脂肪酸等微生物功能的变化。
菌群变化还伴随着代谢功能改变
编辑
2023年发表在 EBioMedicine 的另一项研究则进一步把菌群组成与代谢功能结合起来分析。
发现队列共 1,359人,其中70人为症状性手骨关节炎;
宏基因组测序显示,骨关节炎人群中Bilophila wadsworthia、Hungatella hathewayi、Lactobacillus mucosae和Citrobacter koseri增加,Roseburia intestinalis、Bacteroides、Haemophilus属减少。
研究还发现,肠道微生物的色氨酸生物合成功能下降,同时血液中的吲哚类和犬尿氨酸相关代谢物也发生变化。
骨关节炎患者核心肠道菌群变化的临床试验总结
编辑
DOI: 10.3389/fendo.2026.1802845
综合这些较大规模的人群研究,可以看到一个值得关注的方向:骨关节炎伴随的肠道菌群变化,常涉及部分产短链脂肪酸菌减少,以及部分与炎症或条件致病特征相关的菌增加;与此同时,色氨酸等微生物代谢功能也可能发生改变。
值得继续追问的是:这些变化如何被转化成能够影响远端关节的生物学信号?
肠道屏障受损:肠道里炎症信号如何进入循环?
肠道菌群要影响远端关节,首先需要跨过一个非常重要的界面——肠道屏障。
紧密连接受损,肠道通透性升高
正常情况下,肠上皮细胞之间连接得很紧,ZO-1、Occludin、Claudins等紧密连接蛋白负责把这道边界守住。
菌群长期失衡时,这些连接可能变得松散,肠道通透性随之增加。原本应该被限制在肠腔里的细菌成分,就有机会进入血液循环。也就是常说的“肠漏”。
LPS:研究最多的细菌来源炎症信号之一
其中最受关注的是LPS(脂多糖),它主要来自革兰阴性菌的细胞外膜。
LPS进入循环后,可与LBP(脂多糖结合蛋白)、CD14等分子结合,并进一步激活 TLR4–MyD88–NF-κB 等先天免疫通路,同时促进 NLRP3炎症小体 活化。
编辑
doi.org/10.3390/pathogens15010062
这些信号最终可增加IL-1β、IL-6、TNF-α等炎症介质释放,使机体长期处在较低水平但持续存在的炎症环境中,也就是常说的慢性低度炎症。
对于骨关节炎来说,这一点尤其重要,因为肥胖、代谢综合征、衰老等常见骨关节炎危险因素,本身也经常伴随低度炎症。
骨关节炎人群中也发现了屏障异常的线索
骨关节炎患者血液和滑液中的LPS、LBP水平,与疼痛、结构损伤以及滑膜巨噬细胞活化有关;
在410名手骨关节炎患者组成的DIGICOD队列中,研究者还发现,LBP和Zonulin相关蛋白升高,提示部分患者的肠道屏障确实可能存在异常。
不过,细菌成分并不是肠道菌群影响宿主的唯一方式。事实上,大量微生物并不需要离开肠道,它们每天产生的各种代谢物,本身就能够进入循环并影响免疫和代谢系统。
短链脂肪酸、胆汁酸、色氨酸代谢物,接下来才是肠-关节轴里真正有意思的部分。
菌群代谢物:进入全身循环的化学信号
我们吃进去的食物,有一部分自己消化不了,只能交给肠道菌群继续加工。菌群一边吃,一边不断产生新的小分子,这些分子可以进入循环,参与免疫、代谢、神经调节甚至关节组织。菌群结构一旦改变,身体接收到的这套化学信号也会跟着变。
在骨关节炎研究里,目前最受关注的主要有三类:短链脂肪酸、胆汁酸、色氨酸代谢物。
短链脂肪酸:肠屏障、免疫平衡、软骨保护
前面提到的Roseburia、Faecalibacterium等菌之所以经常出现在骨关节炎研究里,一个重要原因就是它们参与产生短链脂肪酸(SCFAs),其中最常见的是乙酸、丙酸、丁酸。
这些小分子一头连着肠道,一头连着免疫系统。它们可以通过GPR41、GPR43、GPR109A 等受体传递信号,也可以通过抑制HDAC影响基因表达,因此既能帮助维持肠屏障,也会影响巨噬细胞和T细胞的状态。
骨关节炎研究中也出现了越来越直接的证据。
2026年一项动物和细胞研究,给骨关节炎大鼠补充丙酸后,发现疼痛、炎症和软骨损伤都有所减轻,肠屏障也得到改善;
在来源于人骨关节炎患者的软骨细胞中,丙酸还能够调节炎症和细胞外基质相关基因,增强自噬,并减少部分分解代谢和炎症性细胞死亡信号。
注:这类结果目前主要来自动物实验和细胞实验,还不能等同于“补充丙酸能够治疗人类骨关节炎”。它更重要的价值,是证明短链脂肪酸可能真正参与肠-关节轴的调节。
这提示,肠道菌群对关节的影响未必依赖细菌本身进入关节,菌群产生的代谢物和由此引发的免疫变化,就可能改变关节所处的微环境。
胆汁酸:菌群加工、参与免疫调节
胆汁酸最早被认识,是因为它能够帮助消化和吸收脂肪。
但进入肠道以后,初级胆汁酸还会被肠道菌群继续加工,生成一系列次级胆汁酸。
这些胆汁酸不仅参与消化,还可以通过FXR、TGR5等受体影响炎症、葡萄糖代谢、能量代谢以及GLP-1分泌。
因此,菌群结构变化也可能重新塑造胆汁酸谱。
菌群变化 → 胆汁酸组成改变 → 免疫细胞状态改变 → 关节炎症发生变化
2026年一项骨关节炎动物研究提供了一个很有代表性的例子。
研究发现,桑椹水提取物可以增加约氏乳杆菌(Lactobacillus johnsonii),这种菌又能促进HDCA生成,随后巨噬细胞极化发生改变,滑膜炎和软骨损伤减轻。
更进一步的菌株定植实验表明,单独给大鼠定植约氏乳杆菌,也能复制一部分效果。
注:HDCA(Hydroxy Desoxycholic Acid)是次级胆汁酸,由肠道微生物产生,参与脂肪消化和胆固醇代谢,实验显示,它能够影响巨噬细胞的炎症状态,减少促炎型巨噬细胞,并促进偏修复状态的巨噬细胞,从而减轻滑膜炎和软骨损伤。
编辑
doi.org/10.1016/j.phymed.2025.157679
色氨酸代谢:吲哚类物质、肠道屏障、免疫调节
色氨酸是我们从食物中获得的一种氨基酸,但进入肠道以后,它并不会只有一种去路。部分色氨酸会被肠道菌转化成吲哚及其衍生物,比如吲哚-3-丙酸(IPA)和吲哚-3-甲醛(IAld)。
菌群变化 – 代谢改变 – 宿主炎症
这些分子可以激活 AhR(芳香烃受体),进而影响肠屏障和免疫调节。在软骨细胞实验中,部分吲哚类代谢物能够抑制NF-κB相关炎症反应,同时减少基质降解酶,并维持聚集蛋白聚糖和Ⅱ型胶原等软骨成分。
前面那项2023年的大样本人群研究也发现,症状性手骨关节炎人群的菌群色氨酸生物合成功能下降,同时血浆中的多种色氨酸代谢物发生改变。
还有哪些代谢物值得关注?
其他菌群代谢物:GABA、硫化氢、TMAO等
部分研究正在关注GABA、硫化氢(H₂S)、TMAO、多胺以及尿石素等代谢物。
其中,动物和细胞实验提示,某些益生菌产生的 GABA可能具有软骨保护和抗炎作用;孟德尔随机化研究也发现,与微生物硫代谢和H₂S相关的部分代谢通路可能与骨关节炎风险有关。
注:这些研究目前的证据成熟度低于短链脂肪酸等领域,而且同一种代谢物的作用往往与产生部位、浓度和宿主状态有关。最好是看整个菌群代谢网络是否仍然处于稳定状态。
讲到这里,肠-关节轴其实已经走到了一个关键节点:无论是LPS、短链脂肪酸、胆汁酸还是色氨酸代谢物,最后都绕不开一个更核心的调节系统——免疫系统。
免疫系统:菌群信号如何放大炎症
LPS、短链脂肪酸、胆汁酸等微生物相关信号进入循环后,往往需要通过免疫系统,进一步影响关节局部的炎症状态。其中,巨噬细胞和T细胞是目前研究较多的两类免疫细胞。
巨噬细胞:炎症状态发生偏移
巨噬细胞广泛存在于滑膜等关节组织中,也是连接全身炎症与局部关节反应的重要细胞。
在实验研究中,LPS可通过 TLR4–NF-κB、NLRP3炎症小体等通路促进巨噬细胞释放IL-1β、IL-6、TNF-α等炎症因子,使其更偏向促炎状态;而丁酸等短链脂肪酸以及部分次级胆汁酸,则可能通过调节受体信号、表观遗传和细胞代谢,限制过度炎症反应。
编辑
研究中常用“M1型”和“M2型”描述巨噬细胞的促炎和修复倾向。虽然真实组织中的巨噬细胞状态远比这种二分法复杂,但在骨关节炎研究中,促炎型巨噬细胞增加、炎症消退和组织修复能力不足,被认为是滑膜炎持续存在的重要原因之一。
前面提到的HDCA就是一个例子。动物实验显示,肠道菌群产生的胆汁酸变化可以影响巨噬细胞极化,从而减轻滑膜炎和软骨损伤。这说明,菌群代谢变化与关节炎症之间,免疫细胞可能是重要的连接环节。
T细胞:Th17与Treg的平衡
T细胞同样参与骨关节炎相关炎症调节。其中研究较多的是 Th17细胞和调节性T细胞(Treg)。
Th17细胞可分泌IL-17等促炎因子,促进滑膜炎症和组织分解;Treg则通过IL-10等机制抑制过度免疫反应,帮助维持免疫耐受。肠道菌群及其代谢物能够影响这两类细胞的分化,因此菌群失衡有可能推动 Th17/Treg平衡向促炎方向偏移。
编辑
doi: 10.3389/fimmu.2023.1168818
2025年的一项孟德尔随机化研究进一步发现,部分肠道菌群与膝骨关节炎之间的关联,可能由特定CD4+ T细胞和活化Treg相关免疫特征介导。
注:这类结果仍需要更多研究验证,但它提示,菌群对骨关节炎的影响并不只停留在“炎症因子升高”这一层面,还可能涉及更具体的免疫细胞调节。
整体来看,肠道菌群更像是在改变机体的免疫背景:当促炎信号持续存在,而炎症消退和免疫调节能力下降时,原本局限于关节的损伤更容易被放大和维持。
关节组织:炎症最终作用在哪里?
经过肠屏障、循环和免疫系统之后,肠道来源的影响最终仍要落到关节本身。骨关节炎涉及的主要组织包括滑膜、关节软骨和软骨下骨,而且三者之间会相互影响。
滑膜:局部炎症的重要来源
骨关节炎并不是典型的自身免疫性关节炎,但不少患者同样存在不同程度的滑膜炎。
当滑膜中的巨噬细胞等免疫细胞被持续激活后,可释放IL-1β、IL-6、TNF-α等炎症介质,引起滑膜增厚、血管改变和炎症细胞浸润,并进一步加重疼痛和关节肿胀。
这些炎症因子还会作用于软骨细胞,因此滑膜炎并不只是一个伴随现象,而可能持续推动软骨退变。
软骨:合成减少,分解增加
正常情况下,软骨细胞负责维持Ⅱ型胶原和聚集蛋白聚糖等细胞外基质。骨关节炎发生后,这种平衡逐渐被打破。
炎症信号可促进 MMP-13、ADAMTS-5 等分解酶表达。其中,MMP-13主要参与Ⅱ型胶原降解,ADAMTS-5则可分解聚集蛋白聚糖。与此同时,氧化应激、线粒体功能异常和自噬障碍也会影响软骨细胞的生存和修复能力。
近年来,细胞焦亡、铁死亡等程序性细胞死亡机制也被纳入骨关节炎研究,但目前更多仍属于机制研究领域。
软骨下骨:异常重塑改变关节环境
软骨下骨并不是静止的支撑结构。骨关节炎过程中,它会经历持续的骨重塑,涉及破骨细胞、成骨细胞以及 RANK/RANKL/OPG、Wnt 等信号通路。
异常骨重塑不仅会改变骨密度和微结构,还会重新分配关节受到的机械应力,并通过血管、炎症因子和细胞信号继续影响上方软骨。
因此,肠-关节轴最终影响的并不是某一个单独组织,而是进入了骨关节炎本身已有的病理网络:滑膜炎症、软骨分解和软骨下骨重塑彼此促进,使关节逐渐失去原有稳态。
疼痛:为什么“片子不严重,却很疼”?
骨关节炎疼痛与影像学损伤并不总是完全一致。有的人X线改变明显,但疼痛并不突出;也有人影像学改变有限,却长期存在明显疼痛。原因之一,就是骨关节炎疼痛不仅取决于结构损伤,还受到神经系统敏感性的影响。
外周敏化:关节里的痛觉神经变得更敏感
软骨本身几乎没有神经,但滑膜、关节囊、韧带和软骨下骨都存在丰富的感觉神经。
当IL-1β、IL-6、TNF-α、NGF、PGE2等炎症和疼痛相关信号长期升高时,可降低感觉神经末梢的激活阈值,并影响 TRPV1、CGRP 等疼痛相关通路,使原本正常或轻微的刺激更容易被感知为疼痛,这被称为外周敏化。
因此,持续的滑膜炎和局部炎症不仅造成组织损伤,也会直接改变痛觉系统。
中枢敏化:疼痛系统本身发生改变
如果疼痛信号长期、反复进入脊髓和大脑,中枢神经系统也可能逐渐发生适应性改变。
脊髓小胶质细胞活化、p38/MAPK以及CX3CL1/CX3CR1等神经免疫通路,都被认为与骨关节炎慢性疼痛和中枢敏化有关。此时,即使关节局部刺激并没有同步加重,患者仍可能表现出疼痛阈值下降、疼痛范围扩大,甚至对轻微刺激产生明显不适。
肠道菌群可能通过全身炎症、微生物代谢物和神经免疫信号参与这一过程,但目前这部分证据仍以动物和机制研究为主,人体中的直接因果关系尚未完全建立。
这也解释了为什么骨关节炎疼痛不能只看软骨“磨损了多少”。结构损伤、炎症状态和神经敏化共同决定了一个人最终感受到的疼痛程度。
细菌细胞外囊泡:正被关注的新型信号载体
除了LPS和可溶性代谢物,近年来研究者还开始关注另一类微生物来源信号——细菌细胞外囊泡(bacterial extracellular vesicles,BEVs)。
细菌细胞外囊泡是什么?
细菌细胞外囊泡(BEVs) 是细菌释放的纳米级膜性小囊泡,通常由脂质膜包裹,其中可以携带蛋白质、脂质、核酸、代谢物,以及LPS、肽聚糖等细菌成分。
它们的重要特点在于:细菌本身不需要进入关节,部分细菌来源的分子仍可能通过囊泡被运输到远端组织。
编辑
DOI: 10.1080/19490976.2025.2489069
已有研究提示,部分BEVs能够跨越肠屏障进入循环,并影响免疫细胞、炎症通路和远端器官。因此,它们被认为可能是肠道菌群与宿主组织之间一种新的信息传递方式。
不同来源的BEVs,作用可能完全不同
BEVs并不是一种性质单一的物质。
来自革兰阴性菌的囊泡可能携带LPS等促炎成分,激活TLR4等先天免疫通路;
而某些共生菌或益生菌来源的BEVs,则可能具有调节屏障、免疫和代谢的作用。
编辑
DOI: 10.1080/19490976.2025.2489069
近年来,还有研究尝试利用工程化细菌囊泡进行药物或生物活性分子的靶向递送。
注:与LPS、短链脂肪酸等研究相比,BEVs在骨关节炎中的证据仍处于较早阶段。目前更适合把它看作一个值得关注的新机制,而不是已经得到临床证实的骨关节炎致病因素。
到这里,肠-关节轴的基本路径已经比较清楚:肠道菌群可以通过屏障功能、微生物代谢物和免疫调节,影响滑膜、软骨、软骨下骨以及疼痛相关通路。
但这些机制并不会在每个人身上以同样的方式出现。有人更突出的是肥胖和代谢异常,有人以滑膜炎症为主,也有人结构损伤并不严重,却表现出明显的疼痛敏化。也正因为如此,同样是骨关节炎,不同人的症状、进展速度和治疗反应往往差别很大。
在临床和人群研究中,骨关节炎经常与肥胖、糖尿病、心血管代谢异常、肌少症、睡眠障碍以及焦虑、抑郁等问题同时出现。它们有些共享年龄、体重和生活方式等风险因素,有些则可能通过慢性炎症、代谢异常和疼痛形成更复杂的相互影响。
肥胖与代谢综合征:不仅是膝盖承受得更多
|瘦素/脂肪因子;IL-6、TNF-α;胰岛素抵抗;丙酸、吲哚
肥胖与膝骨关节炎之间的关系最容易理解——体重越大,行走、上下楼时膝关节承受的机械负荷越高。
但有意思的是,肥胖与手骨关节炎同样存在关联。手指显然不会因为体重增加而多承受几十公斤重量,这提示肥胖对骨关节炎的影响还有机械负荷之外的部分。
脂肪组织本身具有活跃的内分泌和免疫功能。肥胖时,脂肪组织可释放更多IL-6、TNF-α、瘦素等信号,并伴随胰岛素抵抗、血脂异常和慢性低度炎症。
编辑
DOI 10.3389/fimmu.2026.1892592
瘦素等信号还可以作用于滑膜和软骨细胞,通过JAK/STAT、NF-κB等通路促进炎症和基质分解;游离脂肪酸和脂质代谢异常也可能增加氧化应激,进一步改变关节局部环境。
肠道菌群也可能参与其中。
一项针对肥胖并伴有手、膝骨关节炎人群的粪便代谢组研究发现,与肥胖但无骨关节炎的对照相比,骨关节炎组的丙酸水平降低,二肽和三肽增加,同时吲哚及其他色氨酸代谢物发生改变,并伴有氨基酸代谢、脂肪酸利用和白三烯代谢异常。
因此,高血压、腹型肥胖、高血糖和血脂异常聚集形成的代谢综合征,与骨关节炎之间的联系并不只是体重增加。对这部分患者来说,减重的意义也不仅是给膝盖减负,同时还可能改善全身代谢和炎症环境。
糖尿病:高血糖也会影响关节
|AGEs–RAGE;SCFA、色氨酸;胆汁酸–FXR/TGR5–GLP-1
糖尿病与骨关节炎经常出现在同一个人身上,一部分原因当然来自肥胖、年龄和运动不足等共同因素,但高血糖本身也可能影响关节组织。
长期血糖升高会促进晚期糖基化终产物(AGEs)形成。AGEs可在胶原等长寿命蛋白中积累,使组织弹性下降,并通过其受体RAGE促进氧化应激和炎症反应。与此同时,胰岛素抵抗和糖脂代谢紊乱也可能改变软骨细胞和滑膜细胞的代谢状态。
编辑
doi: 10.1017/erm.2024.7
肠道菌群可能进一步参与这种过程。代谢性骨关节炎研究特别关注短链脂肪酸、色氨酸代谢物以及胆汁酸—FXR/TGR5—GLP-1通路:这些微生物相关代谢信号既参与葡萄糖和脂质代谢,也会影响肠屏障、免疫和关节炎症。
反过来,骨关节炎带来的疼痛和活动减少,又可能使体重、血糖控制进一步恶化。所以在实际生活中,骨关节炎和糖尿病常常不是两个互不相关的问题,而可能形成“疼痛—少动—代谢变差—关节负担进一步增加”的循环。
衰老与肌少症:年龄增加的不只是关节磨损
|SASP、炎症、免疫衰老;Th17/Treg
骨关节炎随年龄增加而明显增多,但衰老带来的变化远不止软骨变薄。
随着年龄增长,软骨细胞的线粒体功能、自噬和修复能力逐渐下降;部分细胞进入衰老状态后,会持续释放IL-6、基质降解酶等炎症和分解信号,这类现象被称为 SASP(衰老相关分泌表型)。
与此同时,免疫系统也会出现免疫衰老(immunosenescence)和 炎症性衰老(inflammaging)。
现有研究提出,肠道菌群失衡和屏障功能下降可能持续提供低水平炎症刺激,进一步放大这种“代谢炎症-免疫衰老”状态,并影响Th17/Treg平衡和巨噬细胞功能。
编辑
很多老年人还存在肌少症(肌肉量和肌力下降)。股四头肌等关节周围肌肉力量不足,会降低关节稳定性,使行走和站立时的负荷分配更加不利;疼痛又会让人更少活动,进一步加快肌肉流失。
睡眠、压力、焦虑、抑郁:越疼越睡不好
|HPA轴;LPS–TLR4–NLRP3;IL-1β/TNF-α/IL-6
慢性骨关节炎患者中,睡眠问题非常常见。
疼痛可以让人难以入睡、夜间频繁醒来;而睡眠不足又会降低疼痛阈值,使第二天对疼痛更加敏感。时间一长,很容易形成“疼痛增加-睡眠变差-痛觉敏感-疼痛进一步增加” 的循环。
长期压力则可持续激活 HPA轴和交感神经系统,改变皮质醇和儿茶酚胺水平,并影响肠道运动、屏障功能和菌群组成。
在动物慢性应激模型中,还观察到 Alloprevotella增加,而Parasutterella、Parabacteroides等减少。这些结果还不能直接套用到骨关节炎患者身上,但说明心理压力确实可能伴随具体的微生态变化。
功能变化:压力导致肠屏障受损后,LPS入血增加,可进一步激活TLR4和NLRP3炎症小体,促进IL-1β、TNF-α、IL-6等炎症因子释放,并参与滑膜炎和疼痛敏化。
编辑
doi: 10.3389/fmicb.2026.1851267
焦虑和抑郁也有类似的双向关系。长期疼痛会影响情绪和生活质量,而持续的压力、焦虑和睡眠不足又可能通过神经、内分泌和免疫系统增强痛觉敏化。
慢性疼痛本身就是关节、免疫系统和神经系统共同参与的生理过程。也因此,有些人的影像学改变并不严重,却可能感受到非常明显的疼痛。
肝脏和肾脏:远离关节,也参与代谢网络
| C. bolteae–GUDCA–FXR–GLP-1;
| 吲哚硫酸、FGF23、维生素D、MMP-13/9
肝脏和肾脏虽然离关节很远,却决定着人体大量代谢物和炎症信号的水平。
肝脏首先连接着脂质、铁和胆汁酸代谢。
研究发现,骨关节炎患者肠道中Clostridium bolteae 相对丰度降低,并与血浆 GUDCA(甘氨熊去氧胆酸) 水平呈正相关;在小鼠实验中补充该菌,可提高UDCA/GUDCA相关胆汁酸和GLP-1水平,并减缓骨关节炎进展。
这说明肝脏产生的胆汁酸可能通过 菌群—胆汁酸—FXR/GLP-1等信号共同影响代谢和关节环境。
另一条值得关注的是铁代谢。肝脏调节的铁调素—铁输出蛋白轴(hepcidin–ferroportin)异常可能增加铁蓄积和脂质过氧化,而 GPX4 等抗氧化系统失衡又与软骨细胞铁死亡有关。不过,这部分目前仍主要属于机制和动物研究。
肾脏则与骨矿物质和尿毒素代谢密切相关。慢性肾病时,FGF23升高、维生素D代谢异常可能影响Wnt/β-catenin等通路,并促进MMP-13、MMP-9等软骨基质降解酶表达;另一方面,肠道菌群参与产生的吲哚硫酸等尿毒素无法及时清除,也会增加氧化应激和炎症。
注:目前肝肾疾病与骨关节炎之间的很多联系仍以相关性和机制研究为主。
口腔健康:牙周炎也可能和骨关节炎有关
|Bacteroidota、Fusobacteriota、LPS生物合成;MAPK11
除了肠道,口腔也是人体重要的微生态系统。
牙周炎是一种慢性炎症性疾病。牙周组织长期发炎时,局部细菌成分和炎症介质可能进入循环,增加全身炎症负荷;与此同时,大量口腔微生物还会随着吞咽进入胃肠道。
近年来,研究人员开始关注“口腔-肠道-关节轴”。
2026年的一项多组学病例对照研究同时分析了骨关节炎患者的口咽菌群、肠道菌群和软骨组织。
编辑
结果显示,骨关节炎组口腔中拟杆菌门和梭杆菌门等相对富集;肠道中观察到瘤胃球菌科(Ruminococcaceae)和Subdoligranulum 等增加。部分肠道微生物还与软骨中的炎症相关基因及细胞外基质重塑蛋白存在相关性。
此外,一些口腔致病菌也提供了机制线索。例如牙龈卟啉单胞菌(Porphyromonas gingivalis) 的成分可进入循环或影响肠道免疫环境;具核梭杆菌(Fusobacterium nucleatum) 产生的细胞外囊泡,也被研究发现能够影响肠道免疫稳态。这些结果为“口腔-肠道-关节轴”提供了一定的生物学依据。
注:这类研究目前样本量仍较小,而且主要属于横断面观察,因此说明口腔菌群和骨关节炎存在关联。它更重要的意义在于提醒我们:影响关节的微生态环境,可能并不只来自肠道。
目前证据最可靠的,仍然是饮食、减重、运动、睡眠和代谢管理;益生元、益生菌以及部分天然活性物已经积累了一定的人体或动物证据;而短链脂肪酸、胆汁酸、FMT、工程菌、噬菌体和细菌细胞外囊泡等,则更多处在机制验证和转化研究阶段。
饮食
最基础,也最容易长期影响菌群
如果要长期改变肠道菌群,饮食几乎是最需要考虑的因素。对大多数人来说,决定菌群每天吃什么的,是一日三餐。
饮食干预总体有效,限能量饮食证据明确
【随机试验Meta分析】
2025年一项系统综述和Meta分析进一步汇总了9项随机对照试验,共纳入898名骨关节炎患者,涉及限能量饮食、地中海饮食、低脂饮食、抗炎饮食、低碳水饮食和植物性饮食等多种模式。总体来看,饮食干预能够改善骨关节炎患者的疼痛和身体功能,并降低体重;其中证据最明确的是限能量饮食,在疼痛、功能和减重方面均表现出显著改善。
编辑
doi.org/10.3390/nu17111872
地中海饮食依从性高的人,疼痛更轻、功能更好
富含蔬菜、水果、全谷物、豆类、坚果、鱼类和橄榄油的地中海式饮食,长期以来被认为有利于心血管和代谢健康。
从肠道菌群角度看,这类饮食同时提供较丰富的膳食纤维、多酚和不饱和脂肪酸,因此也更有利于形成较多样的微生物代谢环境。
【观察性研究】
2026年一项横断面研究纳入了103名原发性膝骨关节炎患者,采用MEDAS评分评估地中海饮食依从性。结果发现,地中海饮食依从性越高,患者的疼痛程度越低,关节功能也越好;在校正部分临床和生活方式因素后,这种关联仍然存在。
饮食的影响可能还与其整体炎症潜力有关
【使用RCT的基线数据】
一项研究发表于2025年,分析了FEAST试验中 144名有症状膝骨关节炎患者的基线数据,用膳食炎症指数(DII)和能量校正后的E-DII评估饮食整体偏促炎还是抗炎。
结果发现,在男性患者中,饮食越偏促炎,能量/活力水平越低,而且校正年龄和BMI后仍存在关联。
少一点高脂、高糖和高度加工食品
长期高脂、高糖、低纤维的饮食模式,在动物和人体研究中都与菌群失衡、肠屏障异常和代谢性炎症有关。减少含糖饮料、精制碳水、反复油炸食品和高度加工食品,不仅是为了体重,也可能减少促炎代谢环境对关节的持续影响。
益生菌
有人体试验,但效果高度依赖菌株
益生菌可以通过竞争性抑制潜在致病菌、改善肠屏障、降低LPS负荷,并调节短链脂肪酸和免疫反应来影响骨关节炎。
人体试验:部分益生菌可改善疼痛和炎症指标
【随机试验Meta分析】
2026年一项Meta分析汇总了8项膝骨关节炎随机对照试验。总体来看,益生菌在VAS疼痛、WOMAC疼痛和僵硬以及血清CRP方面表现出一定改善,但身体功能结果并不完全一致,而且不同菌株、干预时间和患者基础炎症状态造成了较大的研究异质性。
其中比较有代表性的研究包括:
干酪乳杆菌代田株(Lactobacillus casei Shirota)
2017年一项双盲安慰剂对照试验纳入537名膝OA患者,持续6个月,益生菌组WOMAC、VAS疼痛和hs-CRP均优于安慰剂组。
多菌株益生菌
【随机对照试验】
2024年一项纳入147名膝OA患者的双盲试验,使用含 8株乳酸菌和双歧杆菌的Vivomix多菌株益生菌,持续12周。结果显示,益生菌组的行走时疼痛、WOMAC评分和OA严重程度下降,步行速度、握力和平衡能力改善;同时血浆 Zonulin和CRP降低,提示肠屏障通透性和全身炎症可能参与其中。
多菌株益生菌Vivomix (8 strains)包括:
Streptococcus thermophilus DSM 24731,
Bifidobacterium longumDSM 24736,
B. breve DSM 24732/24737,
Lactobacillus spp. DSM 24735/24730/24733,
L. delbrueckii subsp. bulgaricus DSM 24734
【动物实验+人软骨细胞】
研究发现,嗜热链球菌(Streptococcus thermophilus)和戊糖乳杆菌(Lactobacillus pentosus)处理后,小鼠体内GABA水平升高,关节软骨分解和炎症减轻;GABA在人骨关节炎软骨细胞中也表现出一定软骨保护作用。
谷禾搜索多篇相关文献,整理的一些与骨关节炎干预相关的证据较充分的益生菌如下:
编辑
益生元
改变菌群的“营养环境”
益生元是利用饮食底物,让原有菌群中的某些成员获得生长优势。常见的有菊粉、低聚果糖(FOS)、低聚半乳糖以及抗性淀粉等。
低聚果糖:增加双歧杆菌,炎症和软骨损伤减轻
【动物实验】
2018年的研究发现,高脂饮食肥胖小鼠中有益的双歧杆菌减少,而补充低聚果糖后,尤其是 Bifidobacterium pseudolongum明显增加。
与此同时,结肠炎症、循环炎症和滑膜巨噬细胞浸润下降,OA软骨损伤也明显减轻。
注:低聚果糖并没有明显降低这些小鼠的体重,提示它的保护作用不能完全用“减重”解释。
菊粉和低聚果糖:改善功能,影响丁酸和GLP-1
【随机对照试验】
2024年一项研究纳入54名同时患有肥胖和膝OA的成年人,每天补充16 g低聚果糖强化菊粉,持续6个月。与安慰剂相比,益生元组在起立行走、40米快速步行和握力等身体功能指标上表现更好,躯干脂肪量也下降;膝痛呈改善趋势。
【随机对照试验】
一项117名膝OA患者的试验中,每天补充 20g 菊粉6 周后,疼痛较安慰剂下降,同时压力痛阈和时间总和等疼痛敏化指标有所改善。研究还发现菊粉组的丁酸和GLP-1升高。
注意:高剂量可发酵纤维也容易造成腹胀、排气增多等问题,通常需要逐渐增加,而不是突然大量补充。
天然活性物质
可能先经过肠道,再到关节
姜黄素、白藜芦醇、维生素D等天然活性物质,过去更多是从抗炎、抗氧化角度讨论。
一个很有意思的问题:很多植物活性成分口服后的全身生物利用度并不高,大量成分反而会停留在肠道,并接受肠道菌群进一步代谢。因此,它们的部分作用可能首先发生在微生态层面。
编辑
DOI 10.3389/fimmu.2023.1323233
★姜黄素:保护软骨,减轻炎症并改善关节症状
姜黄素在动物研究中可改善肠屏障相关蛋白,并抑制 LPS–TLR4–MyD88–NF-κB 信号以及IL-1β、TNF-α等炎症因子。
【临床研究】
临床研究发现,姜黄素制剂可改善膝骨关节炎患者的疼痛和功能。尤其是一项为期 6周的研究显示,姜黄素纳米胶束可显著改善膝OA相关症状。
姜黄素治疗膝骨性关节炎:一系列临床干预措施
编辑
DOI 10.3389/fimmu.2023.1323233
★白藜芦醇:调节肠道菌群,减轻炎症反应
白藜芦醇则可能同时影响菌群、氧化应激和软骨细胞 Nrf2、NF-κB 等通路。
【动物实验】
研究发现,补充白藜芦醇可改变肠道菌群组成,增加Akkermansia、Ruminococcaceae等有益菌群,并改善肠屏障功能。与此同时,全身炎症、脂肪堆积和高脂饮食引起的肠道菌群失衡均有所减轻。
★辣椒素:缓解关节疼痛,抑制炎症反应
多项临床研究发现,局部外用或关节腔内给予辣椒素,可减轻骨关节炎相关疼痛。其镇痛作用主要与调节痛觉受体 TRPV1 有关,因此辣椒素被认为具有改善骨关节炎疼痛症状的潜力。
辣椒素除直接缓解疼痛外,还可能通过抑制炎症反应减轻骨关节炎相关症状。
【细胞与动物研究】
实验研究显示,辣椒素可下调 COX-2、NF-κB等炎症相关信号,并减少 TNF-α、IL-1β和IL-6 等促炎因子的表达;动物实验中,辣椒素制剂也表现出一定的抗炎和镇痛作用。
★桑葚水提物:提高次级胆汁酸,减轻滑膜炎
我们前面章节已经讲过,一项研究发现,桑葚水提物可选择性增加约氏乳杆菌,进而提高次级胆汁酸 HDCA。
HDCA可以抑制促炎型巨噬细胞状态、促进偏修复型巨噬细胞,从而减轻滑膜炎和软骨退变。
★维生素D:缺乏与OA严重程度相关,补充改善
较低的维生素D水平与更严重的膝骨关节炎症状和结构异常相关。
【临床观察】
2025年的一项研究纳入 171名40–75岁的膝骨关节炎患者,其中63.7%的患者维生素D水平低于30 ng/mL。与维生素D水平正常者相比,维生素D不足或缺乏患者的VAS疼痛评分和WOMAC评分更高、KOOS评分更差,同时更常出现滑膜炎、软骨厚度减少及骨炎等表现。
研究显示,部分研究观察到维生素D补充对膝OA患者具有一定的症状改善作用。
【维生素D2】
例如,一项纳入 175名维生素D不足的膝OA患者的研究中,每周补充40,000 IU维生素D2、持续6个月后,患者的VAS疼痛评分、生活质量和多项身体活动能力均得到改善。
【维生素D3】
维生素D3可能通过调节炎症反应改善OA症状。
一项纳入80名膝骨关节炎患者的研究中,每日补充 4000 IU维生素D3、持续3个月 后,患者的VAS疼痛评分及WOMAC疼痛、僵硬和功能评分均显著改善,同时部分促炎因子水平下降。
维生素D3长期随机对照研究结果并不一致。
一项纳入413名患者、持续2年的研究发现,每月补充 50,000 IU维生素D3 虽显著提高血清维生素D水平,但未显著改善膝关节疼痛或减少软骨体积丢失。
★维生素K:维持软骨矿化稳态
维生素K的潜在获益可能主要体现在原本维生素K不足的人群。
【维生素K1:随机对照试验】
一项纳入378名60–80岁成年人、持续3年 的随机双盲试验中,每日补充 500 μg维生素K1,整体上并未显著降低手部OA、骨赘或关节间隙狭窄的发生。但在基线维生素K不足、随后恢复至充足水平的人群中,关节间隙狭窄的发生率降低约47%。
口服K2可能有助于维持软骨基质完整性。
【维生素K2:动物实验】
2026年的研究发现,在MIA诱导的膝OA大鼠中,每日口服 8 μg维生素K2、持续28天 后,治疗组的软骨组织学损伤明显减轻,Mankin评分由对照组的 11.10降至4.25,同时Ⅱ型胶原保存增加、MMP-13表达降低。
谷禾搜索多篇相关文献,整理的其他和OA干预相关的生物活性物质/天然提取物如下:
编辑
后生元和菌群代谢物
不一定要补活菌
严格来说,现代“后生元”的定义更偏向失活微生物及其组分,短链脂肪酸、胆汁酸等更准确地说属于微生物代谢物。
但在骨关节炎干预中,两者的逻辑非常接近:不一定依赖活菌长期定植,而是直接利用微生物功能。
前文已经详细介绍了丙酸、胆汁酸、GABA、色氨酸代谢物等菌群代谢物在骨关节炎中的作用机制,这里不再展开。 从干预角度看,它们更重要的意义在于:未来可能针对特定代谢物及其受体进行更精准的调节。
FMT
粪菌移植,重建整个菌群
粪菌移植(FMT)是彻底的菌群干预方式之一,把一个完整的微生物群落转移给受体。
【人体供体+动物实验】
2020年的一项研究将健康人、单纯膝OA患者,以及OA合并代谢综合征患者的粪便菌群分别移植给无菌小鼠。
结果发现,接受OA合并代谢综合征人群菌群的小鼠,在关节损伤后出现了更严重的OA,同时肠道通透性和 IL-1β、IL-6、MIP-1α 等全身炎症指标升高。
其中,Fusobacterium、Faecalibacterium增加以及Ruminococcaceae减少,还与OA严重程度和炎症指标存在相关性。
2024年的另一项动物研究则从相反方向证明了这一点:将相对抗骨关节炎的MRL小鼠菌群移植到普通小鼠后,在特定时间窗口内可明显降低OA组织学损伤、滑膜炎和骨赘形成。
注:FMT远比补充某一种益生菌复杂,目前还需要更多人体临床证据支持用FMT治疗OA。
下一代微生态治疗
更精准的设计
下一代益生菌:寻找与功能相关的菌株
2025年一项OA人群研究发现,OA患者中普拉梭菌(Faecalibacterium prausnitzii)和Bacteroides plebeius减少。普拉梭菌是典型的产丁酸菌,也被视为潜在的“下一代益生菌”候选。
工程菌:让细菌在肠道里定向生产药物
合成生物学还可以对细菌进行改造,使其在肠道中持续产生短链脂肪酸、抗炎分子或屏障保护因子。
相比直接反复服药,这种思路理论上可以在肠道局部持续工作。但对于OA来说,目前仍然属于概念和前临床阶段。
噬菌体:精准“删菌”
噬菌体能够感染特定细菌,因此理论上可以针对某些有害菌株进行更精准的清除,而不像抗生素那样大范围破坏整个菌群。但对于OA,目前处于长远方向。
细菌细胞外囊泡
细菌细胞外囊泡(BEVs)可以携带蛋白质、脂质、核酸和代谢物,而且体积只有几十到几百纳米。未来可以筛选有益菌来源BEVs,或者进行工程化改造,用它们递送抗炎或软骨保护分子。
运动
作用肌肉和关节,也可能是肠道
运动本身就是OA管理中证据成熟的一部分:它能够增强关节周围肌力、改善稳定性和功能,并帮助控制体重。
运动可以降低肠源性LPS
【动物实验】
在高脂饮食诱导的肥胖型OA小鼠中,中等程度的自主跑轮运动提高了菌群多样性,并部分逆转高脂饮食造成的菌群变化。
例如运动后Prevotellaceae、Bifidobacteriaceae等增加,而与高脂饮食和内毒素环境相关的部分菌群下降。
更关键的是,运动后血液和滑液中的 LPS下降,同时TLR4和MMP-13表达降低,软骨损伤也减轻。
力量训练:运动干预中证据充分的方法之一
【Meta分析】
2024年一项系统综述和Meta分析显示,力量/抗阻训练能够显著改善膝OA患者的疼痛、关节僵硬和身体功能。
另一项涵盖27项研究、1712名OA患者的Meta分析也发现,抗阻训练可同时改善疼痛、肌力和功能。
对膝OA来说,重点通常是加强股四头肌、臀肌和其他下肢稳定肌群。肌力提高后,可以改善膝关节稳定性和负荷分配,从而减轻活动时的不适。
八段锦:改善疼痛、僵硬、身体功能和总评分
【Meta分析】
2025年一项Meta分析纳入12项随机对照试验、共846名膝OA患者,结果显示,八段锦可改善 WOMAC疼痛、僵硬、身体功能和总评分。
不过,纳入研究之间异质性较高,部分研究方法学质量有限,因此更适合作为OA的辅助运动方式,而不是替代常规治疗。
八段锦同时结合缓慢动作、呼吸调节和注意力训练,因此除了改善关节功能,也具有一定的身心调节特点。
太极:疼痛、僵硬和身体功能改善
【临床RCT证据】
太极也有较多临床证据。 2025年一项纳入13项随机对照试验、701名膝OA患者的Meta分析发现,太极可改善疼痛、关节僵硬和身体功能。太极同时包含低冲击运动、重心转移、平衡训练和呼吸调节,因此既属于运动干预,也兼具一定的身心调节特点。
针对太极、瑜伽和八段锦等身心运动的Meta分析显示,这类干预除改善疼痛和功能外,还可改善心理健康和抑郁症状。
睡眠和压力管理
切断疼痛循环
失眠认知行为疗法:睡眠改善
【随机对照试验】
一项100名同时患有膝OA和失眠患者的随机试验发现,经过8次失眠认知行为治疗(CBT-I)后,夜间清醒时间明显改善;而睡眠改善程度还能够预测之后疼痛的下降。
疼痛应对技能训练:学习放松,疼痛改善
【随机对照试验】
一项纳入256名膝或髋OA慢性疼痛患者的研究发现,经过10次疼痛应对技能训练(PCST)后,患者的疼痛强度、身体功能、心理困扰和自我效能均有所改善。PCST主要训练患者识别灾难化思维、调整活动节奏,并学习放松和疼痛应对策略。
正念:有一定的长期疼痛获益
【试点随机试验】
2022年一项40名膝或髋OA患者的研究评估了8周正念减压(MBSR)。3个月时WOMAC疼痛和功能并未显示明显优势,但6个月时VAS疼痛下降更多,提示正念可能有一定长期疼痛获益,不过目前证据仍较初步。
压力管理并不是简单地保持心情好。
对于长期疼痛、压力大或疼痛灾难化明显的人,CBT/PCST、正念练习、呼吸和放松训练等结构化方法,更有证据基础。
关于肠道菌群与骨关节炎,科学界已经从最初的发现两者有关,逐渐走到了肠屏障、LPS、短链脂肪酸、胆汁酸、色氨酸代谢、免疫调节乃至细菌细胞外囊泡等更具体的机制层面。
机械负荷、衰老、肥胖、代谢异常、炎症、肌力和疼痛敏化仍然共同决定着疾病的发展,而肠道菌群更可能是其中一个可以调节的环节。
下一代益生菌、定义菌群、工程菌、微生物代谢物和BEVs,也可能让基于菌群的调节从宽泛概念逐渐走向精准治疗。
未来值得期待的,是逐渐走向“菌群—代谢物—免疫—临床表型”联合分析,并通过更大规模的人体研究和随机试验,找出哪些骨关节炎患者更适合微生态干预,以及应该干预哪一个环节。
肠道菌群检测在其中,可以与代谢组、炎症指标、体重和血糖血脂等临床信息结合起来看,帮助我们观察功能潜力及干预前后的变化趋势。
与其把关节当成一件会磨损的零件,不如把它看作处在全身炎症与代谢网络中的一个器官,而这张网,有一部分可以由你的饮食、菌群、运动和作息去改变。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Wei J, Zhang C, Zhang Y, Zhang W, Doherty M, Yang T, Zhai G, Obotiba AD, Lyu H, Zeng C, Lei G. Association Between Gut Microbiota and Symptomatic Hand Osteoarthritis: Data From the Xiangya Osteoarthritis Study. Arthritis Rheumatol. 2021 Sep;73(9):1656-1662.
Seow SR, Mat S, Ahmad Azam A, Rajab NF, Safinar Ismail I, Singh DKA, Shahar S, Tan MP, Berenbaum F. Impact of diabetes mellitus on osteoarthritis: a scoping review on biomarkers. Expert Rev Mol Med. 2024 Apr 12;26:e8.
Chowdhury T, Bellamkonda A, Gousy N, Deb Roy P. The Association Between Diabetes Mellitus and Osteoarthritis: Does Diabetes Mellitus Play a Role in the Severity of Pain in Osteoarthritis? Cureus. 2022 Jan 20;14(1):e21449.
Boer, C.G., Radjabzadeh, D., Medina-Gomez, C. et al. Intestinal microbiome composition and its relation to joint pain and inflammation. Nat Commun 10, 4881 (2019).
Ghoullam G, El Binoune I, Amine B, El Moubarik I, Alaoui Kadiri Z, Zemrani S, Rostom S, Bahiri R. Mediterranean Diet Adherence and Its Association With Pain and Functional Status in Knee Osteoarthritis: A Cross-Sectional Study. Cureus. 2026 Jun 12;18(6):e110743.
Kasprzyk N, Nandy S, Grygiel-Górniak B. Diet in Knee Osteoarthritis-Myths and Facts. Nutrients. 2025 May 30;17(11):1872.
Asadi S, Grafenauer S, Burley CV, Fitzgerald C, Humburg P, Parmenter BJ. The effectiveness of dietary intervention in osteoarthritis management: a systematic review and meta-analysis of randomized clinical trials. Eur J Clin Nutr. 2025 Oct;79(10):959-971.
Fladerer-Grollitsch JP, Klein T, Kompek A, Steiner N, Menzel D, Schön C. Effects of cartilage-supporting nutritional supplementation on knee osteoarthritis symptoms and quality of life in a 12-week randomized double-blind placebo-controlled pilot study. Sci Rep. 2025 Jul 15;15(1):25625.
Prinz E, Schlupp L, Dyson G, Barrett M, Szymczak A, Velasco C, Izda V, Dunn CM, Jeffries MA. OA susceptibility in mice is partially mediated by the gut microbiome, is transferrable via microbiome transplantation and is associated with immunophenotype changes. Ann Rheum Dis. 2024 Feb 15;83(3):382-393.
Kouraki A, Franks S, Vijay A, Kurien T, Taylor MA, Smith SL, Smith B, Kelly A, Valdes AM. Effect of Prebiotic Supplementation With and Without Physiotherapy on Pain and Pain Sensitivity in People with Knee Osteoarthritis. Nutrients. 2026 Feb 24;18(5):714.
Karim A, Khan HA, Iqbal MS, Ahmad F, Qaisar R. Probiotics’ supplementation alleviates disease severity and improves postural balance by repairing intestinal leak in patients suffering from osteoarthritis: a double-blinded clinical trial. Br J Nutr. 2024 Dec 28;132(12):1602-1610.
Chen K, Sun Y, Cui L, Zhu Y, Zhang B, Wu L. Effectiveness and safety of probiotics in treating knee osteoarthritis: an updated systematic review and meta-analysis of randomized controlled trials. Front Med (Lausanne). 2026 Jun 16;13:1799943.
Law L, Heerey JJ, Devlin BL, Brukner P, De Livera AM, Hebert JR, Price S, White NP and Culvenor AG (2025) The inflammatory potential of diet in adults with knee osteoarthritis: sex-specific associations with quality of life, sleep, fatigue and mental health. Front. Nutr. 12:1624852.
Huang K and Cai H (2026) Mechanisms of pain occurrence in osteoarthritis: peripheral triggers, sensitization, and the path to persistence. Front. Immunol. 17:1820875.
Neogi T, Felson DT, Sarno R, Booth SL. Vitamin K in hand osteoarthritis: results from a randomised clinical trial. Ann Rheum Dis. 2008 Nov;67(11):1570-3.
Fladerer-Grollitsch JP, Klein T, Kompek A, Steiner N, Menzel D, Schön C. Effects of cartilage-supporting nutritional supplementation on knee osteoarthritis symptoms and quality of life in a 12-week randomized double-blind placebo-controlled pilot study. Sci Rep. 2025 Jul 15;15(1):25625.
谷禾健康
白藜芦醇是一种来源于葡萄皮、蓝莓、花生、虎杖根等植物中的天然多酚化合物,被誉为“植物界的青春分子”。在过去二十年中,白藜芦醇成为科研界的明星物质,从抗氧化、抗炎、降脂,到抗衰老、心血管保护、神经保护、甚至代谢性疾病干预和抗癌,都有相关的研究支持。它的作用范围之广,让它一度被誉为“健康防护伞”。
正因如此,白藜芦醇逐渐从实验室走进大众视野,成为风靡全球的功能性补充成分。数据显示,2024年全球白藜芦醇市场规模达8.6亿美元,年增长率约为8.2%。在中国,含白藜芦醇的营养品、红酒饮品和护肤品等广泛应用于多个领域。从胶囊、片剂、饮品、粉剂到外用精华,白藜芦醇的产品层出不穷;它既是“抗氧化”营销的主角,也是“抗衰老配方”的常客。
然而,现实中的挑战在于——“吃进去”和“吸收到”并不是一回事。白藜芦醇的吸收率极低。口服后,它会在肠道与肝脏迅速被代谢,只留下极少量活性物质能够进入血液。并且不同产品的剂型、工艺和载体,也让有效吸收差异悬殊。换句话说,即使你喝下一整瓶红酒,身体中真正利用到的白藜芦醇也微乎其微。这一“高潜力、低利用”的特性,成为白藜芦醇临床转化的最大瓶颈。
近年来的研究揭示了一个新的突破口:肠道中的有益菌可以将白藜芦醇转化为更稳定、更容易吸收的代谢物,如二氢白藜芦醇;同时,白藜芦醇自身也能促进某些健康菌群(如Akkermansia muciniphila、Bifidobacterium)的生长,从而形成良性循环。这种“双向作用”不仅提高了其生物利用度,也放大了其抗炎、调节代谢及保护肠壁的健康效应。并且在临床治疗中也具有多种健康益处。包括降低炎症水平、缓解炎症性肠病、改善代谢功能障碍如肥胖、减轻糖尿病症状,改善生活质量等。
因此,现代的白藜芦醇补充理念,已经从单纯追求“吃多少”,转向“如何让它更被身体吸收、更懂身体需要”。正尝试通过多种创新方式让这类分子真正被身体“用得其所”:
如通过脂质体或纳米颗粒包裹可防止白藜芦醇在消化过程中被破坏;与特定益生菌、益生元结合可形成“菌群友好”配方,促进其在肠道转化为更高效的代谢产物。日常摄入富含膳食纤维和益生元的食物,如燕麦、洋葱、低聚果糖等,能为肠道“打好地基”,让白藜芦醇的代谢与吸收更流畅。
还有一些人群更进一步选择个性化补充方案——根据自身肠道菌群特征、饮食模式与代谢基因,定制出更高吸收率、更合适剂型的白藜芦醇产品。
除此之外,补充方式与时间也在影响吸收效果。研究发现,与含少量健康脂肪的食物同服,能显著提升白藜芦醇的溶解与穿透率;而分次小剂量摄入,则能在血液中维持更稳定的有效浓度。
通过本文,你将更加深入、系统地了解白藜芦醇,从它的来源与作用到它在身体中的多重益处。同时,我们还将一步步教你如何科学、有效地补充白藜芦醇,让它真正发挥应有的健康价值。
▸ 什么是白藜芦醇?
白藜芦醇(常写作 RSV)是一种天然多酚,属于“二苯乙烯”与“芪类化合物”。是植物在受伤、紫外线或病原侵袭时合成的自我保护性“植物抗毒素”。
白藜芦醇最初的来源是白藜芦(Veratrum grandiflorum)的根部,随后又在虎杖根和何首乌根中相继分离得到。
其主要有反式(trans)和顺式(cis)两种形态;反式更稳定,在食物与补充剂中最常见,也常被作为含量的标记形式。
白藜芦醇化学结构(顺式和反式)
doi: 10.3390/biomedicines6030091.
▸ 为何白藜芦醇近来受到广泛关注?
许多研究表明,白藜芦醇在抗氧化、抗炎、代谢调节方面展现出多重潜力,并对心血管系统与神经系统具有一定的保护作用;然而,口服进入机体后会迅速发生代谢或转化,导致体内可及的活性形式与暴露时间受限,其在人群中的真实有效性与剂量设定、给药制剂特性以及个体差异等因素密切相关。
部分观察到的生物效应还可能归因于其代谢产物(如二氢白藜芦醇等)在生理浓度下的作用,而并非完全来自母体分子本身的直接作用。
▸ 主要天然来源(食物与饮品)
白藜芦醇主要存在于植物中,但含量受品种、部位(尤其是果皮)、成熟度、气候/病虫压力、加工发酵和储存条件影响很大,范围变化可达数十倍。以下为常见来源(不同研究会有差异):
⑴葡萄及其酒类
红葡萄皮与红葡萄酒:大众最主要的膳食来源之一。红酒中一般为每毫升0.1–数微克,个别品种与特定发酵条件可更高;与果皮接触时间越长含量越高。
白葡萄酒:由于与果皮接触短,含量通常低于红酒。
鲜葡萄(尤其是皮):以微克/克量级存在,深色品
种通常更高。
⑵浆果类
蓝莓、越橘、蔓越莓、草莓等:多数在微克/克或更低水平。北方野生小浆果在某些季节或品种中含量可偏高。
白藜芦醇的膳食来源
Koushki M,et al.Food Sci Nutr.2018
⑶花生及其芽、花生皮
花生仁含量为微克/克级别;花生皮与花生芽通常更高一些。烘焙、储存方式会影响最终含量。
⑷其他植物来源(作为日常饮食的贡献较小)
蓼科植物如虎杖、何首乌等根茎中常含量较高,这些也是工业提取与标准化补充剂的主要原料。
桑科、松科及部分药食同源植物中也可检出,但平时摄入量有限。
白藜芦醇的植物来源
doi: 10.1002/jsfa.10152.
▸ 非天然来源
⑴生物技术生产
为克服天然来源含量低、波动大,已开发酵母/细菌发酵、植物细胞培养与酶法合成等途径,可规模化制备反式白藜芦醇及其结构类似物。
⑵富集或强化食品
市面上也有用提取物进行“功能强化”的饮品或食品,本质是外加标准化原料。
一句话小结
白藜芦醇是植物在遭受外界胁迫时为自我防御而合成的天然多酚化合物,人类的主要膳食来源包括葡萄,尤其是葡萄皮与由其酿制的红酒,以及多种浆果与花生等食物。
尽管这些来源广泛且日常可见,但天然食物中的绝对含量普遍不高,且因品种、产地与加工方式差异而波动明显,实际摄入常难以稳定达到预期水平,因而可能存在摄入不足的情况。
根据研究人员的实验(大部分为动物实验),白藜芦醇已展现出多重潜力:包括抗氧化、抗炎、抗癌、抗菌、心脏保护和神经保护等活性。
▸ 抗氧化
多项研究表明,白藜芦醇具有显著抗氧化活性,主要与其清除自由基(如超氧、羟基自由基、过氧化氢、一氧化氮、二氧化氮)、激活抗氧化酶及诱导其表达相关。
白藜芦醇的抗氧化能力甚至强于维C和维E
同一研究还显示,反式白藜芦醇的清除能力强于维生素E和维生素C,并可通过清除自由基与螯合铜离子减少脂质过氧化。
体外实验比较了反式白藜芦醇、紫檀芪和槲皮素在人人红细胞中的抗氧化效果。相较另外两者,白藜芦醇对AAPH诱导的溶血抑制更显著,并能防止AAPH处理下红细胞谷胱甘肽下降。
白藜芦醇抗氧化活性的机制
Radeva L,et al.Pharmaceutics.2025
以四丁基氢过氧化物诱导红细胞氧化应激时,白藜芦醇亦表现出保护作用,体现在提升细胞内膜相关的还原型谷胱甘肽与巯基水平。
▸ 抗炎
白藜芦醇的抗炎作用主要源于其对多条炎症信号通路的调控,如抑制花生四烯酸、NF-κB、MAPK 和 AP-1 等通路。
抑制NF-κB、MAPK等炎症通路,降低IL-8释放
在肺上皮细胞(A549)中,它可抑制 NF-κB、AP-1 与 cAMP 反应元件结合蛋白依赖性转录(甚至强于地塞米松),降低 IL-8 与粒细胞-巨噬细胞集落刺激因子释放,并抑制细胞因子刺激诱导的 iNOS 表达和亚硝酸盐生成。
此外,在经 PMA 与钙离子载体 A23187 处理的人肥大细胞系(HMC-1)中,白藜芦醇通过降低细胞内 Ca2+ 与 ERK1/2 水平,抑制 IL-6、IL-8、TNF-α 与 COX-2 的表达。
白藜芦醇下调的不同炎症细胞因子和信号通路
Prakash V,et al.Int J Mol Sci.2024
▸ 抗癌
白藜芦醇改变癌细胞代谢抑制其增殖
关于白藜芦醇的抗癌活性,普遍认为其多酚的促氧化效应及由此引发的凋亡是关键因素。其可能机制包括抑制I期代谢酶(CYPs),调控Nrf2及其靶基因表达,抑制肿瘤细胞生长,通过调节VEGF抑制血管生成与转移,并通过改变癌细胞代谢降低其增殖能力。
其官能团中,尤其是4′-羟基,被认为对遗传毒性活性(基因突变、染色体畸变、DNA损伤)至关重要。白藜芦醇的抗肿瘤作用已在体内外得到验证。在MCF-7、MDA-MB-231乳腺癌细胞系及EAC小鼠模型中,其与阿霉素联用表现出协同效应:通过抑制NF-κB、COX-2、LC3、Beclin-1和Nrf2增强阿霉素细胞毒性,并通过提高BAX/BCL-2比值促进凋亡。
白藜芦醇通过调节肿瘤进展的不同方面发挥抗癌作用
Prakash V,et al.Int J Mol Sci.2024
体内研究也证明白藜芦醇可抑制肿瘤增长
体内研究亦显示白藜芦醇可抑制肿瘤体积增长并延长生存期。其还能在体外增强吉西他滨对胰腺癌(PaCa)细胞的抗肿瘤活性,并在PaCa异种移植裸鼠中提高疗效:抑制增殖、增强凋亡,阻断NF-κB激活并下调BCL-2、BCL-xL、COX-2、Cyclin D1、MMP-9和VEGF的表达;同时降低增殖标志物Ki-67水平与微血管标志物CD31密度。
▸ 抗衰老
白藜芦醇还被认为具有抗衰老并延长寿命的潜力,其机制与抗氧化、减少白蛋白尿、炎症与细胞死亡、维持骨密度、提升主动脉弹性和运动协调等作用相关。
抑制衰老相关基因表达,减少认知衰退
此外,它可抑制衰老相关基因表达,调控 cAMP–PKA–AMPK 或 PI3K 级联反应,并激活去乙酰化酶家族成员,尤以 SIRT1 为代表。该家族(人类共7个成员)通过调节应激下的细胞代谢与多种底物,参与衰老相关病理过程。白藜芦醇还能降低认知与氧化损伤(如丙二醛水平)、减少大脑皮层脂褐素积累,促进端粒酶活性与 SIRT1 表达,并下调 p53。
白藜芦醇还可延缓卵巢衰老
研究亦显示,白藜芦醇可延缓卵巢衰老。长期给药可提高衰老小鼠卵泡与卵母细胞的数量与质量,增强端粒酶活性与 SIRT1 表达并抑制端粒缩短;在低浓度(0.1μM)下还能促进胚胎细胞增殖。因此,白藜芦醇被视为预防年龄相关疾病的有前景的抗衰老候选物。
▸ 抗菌
据报道,一些真菌对白藜芦醇敏感,特别是白色念珠菌、絮状表皮癣菌、扁桃体毛癣菌、北色毛孢菌等。作用机制包括通过抑制电子传递链和 F0F1-ATP 酶来减少细胞的能量产生,通过产生 DNA-白藜芦醇-Cu(II) 复合物来破坏 DNA,通过抑制 FtsZ 基因来抑制细胞分裂,抑制生物膜的形成,调节群体传感,降低运动和毒素的产生。
白藜芦醇可增强一些抗菌药物的疗效
例如,白藜芦醇可以增强氨基糖苷类药物对革兰氏阳性病原体(金黄色葡萄球菌、表皮葡萄球菌、屎肠球菌和粪肠球菌)的活性,并增强其对铜绿假单胞菌产生的生物膜的作用。研究观察到,4′OH基团与甲氧基基团的结合增强了抗菌活性。
多项研究证实,白藜芦醇能有效抑制细菌生物膜的形成,其主要机制之一是干扰细菌的运动能力。不仅如此,白藜芦醇还表现出强大的协同作用。临床研究发现,当白藜芦醇与抗生素“粘菌素”联合使用时,能够有效对抗那些已对粘菌素产生耐药性的铜绿假单胞菌(P.aeruginosa)菌株。在小鼠感染模型中,这种联合疗法成功清除了多重耐药菌。
进一步的机制研究表明,白藜芦醇之所以能产生如此显著的效果,是因为它能破坏细菌的细胞膜结构。这种破坏导致细胞膜通透性增加,最终引发细胞内容物泄漏和细胞裂解。这暗示白藜芦醇无论是单独使用还是与传统抗生素联用,都在应对日益严峻的细菌耐药性问题上展现出巨大的潜力。
▸ 血管松弛作用
白藜芦醇通过多种机制发挥血管舒张作用
白藜芦醇的血管舒张作用涉及多种机制:抑制TxA2合成、激活Ca2+依赖性K+通道、增强一氧化氮(NO)信号并抑制血管NADH/NADPH氧化酶活性,同时上调eNOS与iNOS表达。
在主动脉环模型中,存在内皮时以去氧肾上腺素预收缩,缺失内皮时以KCl预收缩。多种拮抗剂(如吲哚美辛、亚甲蓝、sGC抑制剂、L-NAME、TEA、4-AP、氯化钡、格列本脲及普萘洛尔)均在有内皮条件下显著减弱其舒张效应,尤以吲哚美辛最明显。进一步结果显示,白藜芦醇通过减少肌浆网Ca2+释放阻断钙通道,并影响K+通道、PGI2与NO/sGC/cGMP通路,以及G蛋白偶联的β肾上腺素能和毒蕈碱受体信号。
▸ 神经保护作用
白藜芦醇的另一项重要作用是神经保护。多酚对中风、痴呆、硬化症、阿尔茨海默病和帕金森病等多种神经系统疾病具有活性,其效应与抗氧化、血管舒张和抗炎作用相关。
白藜芦醇能抑制β-淀粉样蛋白聚集,防止神经元变性
白藜芦醇还能激活SIRT1与AMPK、抑制β-淀粉样蛋白聚集;通过增加阳性酪氨酸羟化酶细胞数,防止黑质多巴胺能神经元变性,并抑制α-突触核蛋白与GRP78聚集;同时保护Na+/K+ ATP酶泵、维持CYP2d22 mRNA表达,提升乙酰胆碱酯酶、ATP及囊泡单胺转运蛋白2的表达。
在体外,白藜芦醇可缓解SH-SY5Y细胞抗氧葡萄糖剥夺引起的线粒体功能障碍:降低caspase-3/9活性,通过增强AMPK/p-AMPK恢复细胞活力,并上调Bcl-2、CREB、PGC-1α与NRF-1。
减缓阿尔茨海默病的记忆衰退,延缓多发性硬化症发病
在阿尔茨海默病(APP/PS1)小鼠中,它减缓记忆衰退(伴随突触素增加)、降低Aβ斑块负荷,提升线粒体复合物IV蛋白和SIRT1/AMPK通路活性,并上调IL-1β与Tnf mRNA,有助于减少斑块。
多发性硬化模型中,纯白藜芦醇与增强吸收制剂SRT501在高剂量下均延缓发病与神经元丢失,改善视觉功能,但未降低脊髓与视神经炎症或改变表型。在脊髓损伤大鼠中,白藜芦醇通过降低TNF-α、IL-1β并提高IL-10改善运动与炎症;同时上调Beclin-1、LC3-II及p-AMPK,抑制p-mTOR,从而促进自噬、缓解炎症并促进功能恢复。
总体而言,白藜芦醇具有显著神经保护潜力,但其疗效受疾病类型与病理机制影响。
▸ 心脏保护作用
白藜芦醇的心脏保护效应被认为源于其抗增殖、抗氧化、抗炎(降低ROS与氧化LDL)、调控多条细胞信号通路、维持血管稳态、促进血管舒张、改善内皮功能及抑制血小板聚集的综合作用。
白藜芦醇抑制心肌肥大,减少间质纤维化
在小鼠异丙肾上腺素诱导的梗死后心衰模型中,白藜芦醇可抑制心肌肥大,降低血浆BNP,增强左室收缩功能,减少间质纤维化,改善应激与存活通路,并纠正氧化应激。
长期给药于自发性与恶性高血压大鼠可降压,抑制脂质过氧化,通过直接及酶促清除活性氧改善氧化状态,增强NO释放,上调SOD、过氧化氢酶与谷胱甘肽过氧化物酶,抑制髓过氧化物酶与TGF-β活性及细胞凋亡,并改善心肌形态学改变。
减轻化疗相关心脏毒性
白藜芦醇还能减轻化疗相关心脏毒性。在埃利希氏腹水癌小鼠中,与阿霉素(15 mg/kg)联用白藜芦醇(10 mg/kg)提高存活率与平均生存期;联合治疗的心肌组织未见阿霉素单用时的肌细胞溶解与碎裂,说明白藜芦醇既增强阿霉素对肿瘤的细胞毒性,又保护心肌。其减轻阿霉素心毒的主要途径包括降低氧化应激、凋亡、自噬与药物诱导纤维化。
注:阿霉素(Doxorubicin)是一种蒽环类抗生素类抗肿瘤药物,广泛用于治疗白血病、淋巴瘤、乳腺癌、肺癌等多种恶性肿瘤。
进一步研究表明,将白藜芦醇与阿霉素共同负载于复合纳米凝胶或聚合物胶束中可增强这一心脏保护效应。总体而言,白藜芦醇的心脏保护潜力显著,值得在治疗策略中进一步开发与应用。
尽管白藜芦醇以其抗氧化、抗炎与代谢调节等潜力备受关注,但作为一种植物激素,白藜芦醇水平因食物来源、季节和批次而异。某些食物天然富含白藜芦醇,如葡萄酒、莓果等;然而,膳食来源中的白藜芦醇含量仍处于较低的范围,并且以膳食补充时也存在一些限制。
▸白藜芦醇的吸收、代谢
在讨论补充白藜芦醇面临的限制前,我们先了解白藜芦醇在人体内的吸收与代谢过程。只有在充分掌握其进入机体后的吸收途径、转运方式以及代谢转化特征的基础上,才能更清晰地认识到这些限制因素。
▸ 营养素的溶解度影响白藜芦醇的吸收
摄入白藜芦醇或其前体后会通过胃肠道传播,在肠道中,白藜芦醇与多种营养物质结合,如蛋白质,这些营养素的溶解度会影响其的吸收或消除。
白芦藜醇的代谢过程
doi: 10.3945/an.117.016568.
白藜芦醇的吸收主要通过两种机制发生:其一为跨肠上皮细胞的被动扩散;其二为载体介导的转运,即与肠膜上的特定转运蛋白(如整合素)形成复合物而被主动摄入。
进入体循环后,游离形态的白藜芦醇会与血浆中的脂蛋白和白蛋白结合,从而被输送至全身组织。然而,白藜芦醇的生物利用度极低,其根本原因在于广泛的首过效应(first-pass effect):在吸收过程中及进入肝脏后,绝大部分游离白藜芦醇会迅速被肠道和肝脏中的II相代谢酶进行生物转化,主要发生葡萄糖醛酸化(glucuronidation)和硫酸化(sulfation)反应,形成无生物活性的代谢物,从而导致血液中具有生物活性的游离白藜芦醇浓度被显著降低。
▸ 主要以葡萄糖醛酸和硫酸盐形式运输至其他组织或器官
肠细胞,也称为吸收性上皮细胞,是白藜芦醇代谢的第一个位点,在被动扩散或载体介导的转运中内化后。一旦白藜芦醇被肠细胞吸收,就像其他异生素一样,它会经历药物代谢的 II 阶段,产生极性代谢物,更容易在体内排泄。
因此,白藜芦醇的主要循环形式是葡萄糖醛酸(反式白藜芦醇-3-葡萄糖苷酸、反式白藜芦醇-4′-葡萄糖醛酸)和硫酸盐(反式白藜芦醇-3-硫酸盐、反式白藜芦醇-3,4′-二硫酸盐、反式白藜芦醇-3,5-二硫酸盐)结合代谢物。
白藜芦醇在人体胃肠道中的代谢和转化
Springer M,et al.Nutrients.2019
当白藜芦醇及其代谢物进入血液后,可与脂蛋白、血红蛋白和白蛋白等结合并被运输,随后分布至肝脏、肾脏等外周组织。
▸ 影响白藜芦醇补充效果的因素
生物利用度低
白藜芦醇在体内活性降低的主要原因是生物利用度偏低,可能源于其广泛代谢。主要代谢途径包括肝肠道中的酚基硫酸化与葡萄糖醛酸化,以及可能由肠道菌群介导的脂肪族双键氢化。多数给药剂量以代谢物形式从尿中排出,广泛硫酸化被视为生物利用度低的关键原因。
在6名志愿者中分别以口服和静脉注射评估4种C-白藜芦醇的吸收与代谢:25 mg口服剂量的吸收率≥70%,半衰期9.2±0.6小时,但血浆中未转化白藜芦醇仅<5 ng/mL。
同样,有研究在体外(人肝微粒体、人肝细胞、大鼠肝细胞)与体内(大鼠/小鼠口服或腹腔给药)考察白藜芦醇的代谢途径。各样品均未见Ⅰ期代谢物,肝微粒体中亦未检出。大鼠尿液及人、鼠肝细胞中主要代谢物为反式白藜芦醇-3-O-葡萄糖醛酸与反式白藜芦醇-3-硫酸盐,并有少量顺式代谢物。与游离体相比,这些代谢物活性常降低或改变。
综上,白藜芦醇代谢物相较游离体在体外普遍显示活性减弱或改变;但体内受再生代谢、组织分布与酶环境影响,效应可能不同,仍需进一步研究。
低水溶性
另一个问题是其水溶性低。白藜芦醇在水中的溶解度为0.05 mg/mL,这被认为是其生物利用度低的原因之一。
相比之下,其在酒精(87.98 mg/mL)和PEG400(聚乙二醇400)中的溶解度更高。不同油中,椰子油的溶解度最高。采用羟丙基-β-环糊精(HP-β-CD)和甲基化β-环糊精(RM-β-CD)制备口服与静脉制剂可提高水中溶解度,但仍难以克服低生物利用度;仅RM-β-CD口服时可提升血浆峰值浓度。
稳定性低
白藜芦醇的另一个问题是它在不同条件下的稳定性较低。研究表明其在酸性条件(pH 2–7)更稳定,尤其在pH 5–6及中性环境下,>70%可稳定超过200天;而pH升至8–10时,约两个月仅剩2%,碱性水解被认为是主要降解机制。在pH 6.8的培养基中即开始降解,至pH 7.4、37 °C时24小时内降解更明显。降解程度与温度呈正相关:冷冻可抑制反应,37 °C降解加速。
pH 6.8–8范围内降解符合一级动力学,pH 9呈现一级与零级并存,pH 10则类似自催化过程,机制与结构中OH基团解离度相关。
光稳定性同样有限。紫外辐照后,在306 nm(反式)与287 nm(顺式)处出现峰,顺式保留时间更长。在254 nm与360 nm照射下观察到反式转顺式,并出现未知产物;在阳光下曝晒30分钟,顺式变化显著,且受日照强度影响。这些结果提示反式白藜芦醇的储存与运输较为困难。
上述这些存在的问题,都会在补充白藜芦醇时产生影响,进而削弱其实际效果与总体药理潜力。
口服后,白藜芦醇在上消化道(胃和小肠)中经历广泛而动态的代谢,从而转化为更易水溶的可吸收形式。然而研究发现,白藜芦醇及其代谢物可以通过肠道微生物群在结肠中进一步代谢。
▸ 肠道微生物代谢白藜芦醇
白藜芦醇及其代谢物可在结肠中被肠道微生物群进一步代谢:已生成的代谢物可被水解再生白藜芦醇,并发生额外的还原反应。
▸ 一些肠道细菌可将白藜芦醇前体代谢为白藜芦醇,提高其生物利用度
肠道细菌可将白藜芦醇前体代谢为白藜芦醇,提高其生物利用度。具体而言,它们水解植物糖苷(如前体piceid),释放其糖苷元。婴儿双歧杆菌(Bifidobacteria infantis)和嗜酸乳杆菌(Lactobacillus acidophilus)可由白藜芦醇苷生成白藜芦醇。
相反,白藜芦醇在肠道中也可再糖基化生成白藜芦醇苷。白藜芦醇苷(piceid)及其葡萄糖醛酸结合物既可游离态吸收,也可以结合态吸收。
▸ 肠道菌群代谢产生白藜芦醇衍生物
另一方面,肠道细菌可代谢白藜芦醇及其前体,生成多种衍生物。报道最充分的是二氢白藜芦醇,可由Slackia equolifaciens和Adlercreutzia equolifaciens产生;此外还可生成两种反式白藜芦醇代谢物:3,4′-二羟基反式二苯乙烯和3,4′-二羟基联苄(lunularin)。
肠道细菌还代谢花苜蓿产生二氢芼苜蓿和二氢白藜芦醇。作为白藜芦醇,肠道细菌来源的白藜芦醇衍生物也与其葡萄糖醛酸形式偶联。
肠道微生物群对白藜芦醇的代谢
Chaplin A,et al.Nutrients.2018
此外,摄入葡萄提取物或红酒后,人血浆与尿液中二氢白藜芦醇葡萄糖醛酸的水平高于白藜芦醇葡萄糖醛酸和其葡萄糖苷。在补充白藜芦醇的大鼠中,肝脏检测到二氢白藜芦醇葡萄糖醛酸,肝脏与脂肪组织检测到其硫酸酯;且肝脏中二氢白藜芦醇硫酸酯明显高于白藜芦醇硫酸酯。上述结果强调了肠道微生物群在白藜芦醇代谢中的关键作用,尤其在大量生成特定衍生物方面。
▸ 肠道菌群衍生的白藜芦醇代谢物活性更高
口服白藜芦醇后,本体在血液和组织中含量极低,但动物与人体研究却反复观察到其抗炎、抗癌等效应。研究发现,肠道细菌会将白藜芦醇转化成二氢白藜芦醇(DHR)和lunularin(LUN),且这两类代谢物(以及它们的葡萄糖醛酸化、硫酸化结合物)在组织、消化道和体液中的含量远高于白藜芦醇本身或其结合物,并且其活性更“给力”。
注:基于粪便16S rRNA测序,lunularin生产者与拟杆菌门、放线菌门、疣微菌门丰度更高、厚壁菌门更低相关。
抗癌相关作用:LUN在肾癌(786-O、A498)和结肠癌(HCT-116、HT-29)细胞中更强地抑制增殖与克隆形成;DHR单独作用中等,但与LUN合用常表现更强抑制,提示二者可能存在协同。
抗炎作用:在巨噬细胞与TLR4通路模型中,LUN对炎症介质(如NO、SEAP)的抑制呈剂量依赖,并且普遍强于同水平白藜芦醇;DHR单独抑制较弱,但与LUN联用可进一步增强抑制效果。
值得注意的是:若用相同“摩尔浓度”比较,白藜芦醇本体在体外也能很强,但这些高剂量在体内难以达到;相反,DHR和LUN在体内“确实达到的浓度”下就能表现出更贴近实际的生物效应。
▸ 白藜芦醇改善肠道屏障
大量证据表明,白藜芦醇及其代谢物有益于肠道健康。
▸ 上调紧密连接、改善黏膜屏障
在小鼠模型中,补充白藜芦醇可上调紧密连接与黏膜屏障相关分子(ZO-1、ZO-2、Occludin、JAM-A、MUC1/2、Claudins),从而强化屏障功能;并提高空肠/回肠绒毛高度,改善肠道形态(见仔猪与高脂饮食诱导的NAFLD模型),这对营养吸收具有重要意义。
▸ 减轻肠道菌群失衡引起的内皮损伤等
肠道菌群失衡与多种慢性病相关,相关研究迅速发展。在内皮功能障碍中,NO生物利用度下降、氧化应激增强、NLRP3炎性小体活化是特征。ADMA(NOS竞争性抑制剂)升高可通过改变肠菌组成并激活肠道与海马NLRP3,加重内皮损伤与认知障碍;此时拟杆菌类增加、Anaerotruncus减少,而白藜芦醇可部分纠正这些变化。
▸ 调整肠道微生物群组成
▸ 降低致炎菌丰度,增加产短链脂肪酸益生菌
在高脂饮食诱导的非酒精性脂肪性肝病(NAFLD)小鼠中,白藜芦醇通过重塑菌群、减轻体重、改善肠屏障,并缓解胰岛素抵抗、脂质沉积、氧化应激与炎症,从而改善病情。
具体表现为:降低产脂多糖并致炎的脱硫弧菌(Desulfovibrio)与与肥胖相关的Alistipes;提高产短链脂肪酸(SCFA)的Allobaculum与Blautia,升高异丁酸与丁酸水平;增加Roseburia(有助于抗病原与抗炎)与益生菌罗伊氏乳杆菌(可产生抗菌分子);并提高Tenericutes与放线菌门成员,分别参与顽固碳源降解与抗病毒。
▸ 白藜芦醇既能抗菌,又能调整菌群结构
研究表明,补充白藜芦醇通过两种主要方式影响微生物组:一是直接抗菌,二是调节肠道菌群结构。与对照组相比,白藜芦醇处理小鼠缺乏Parabacteroides jonsonii、Alistipes putredinis和Bacteroides vulgatus。在大鼠中,白藜芦醇提高双歧杆菌与乳酸杆菌水平,降低大肠杆菌和肠杆菌水平。其抗大肠杆菌作用与抑制FtsZ表达及Z环形成(细菌分裂关键步骤)有关,显示对革兰阳性与阴性菌均具广谱活性。
肥胖常伴厚壁菌门(Firmicutes)/拟杆菌门(Bacteroidetes)比值升高,而白藜芦醇在啮齿动物中降低了该比值。Firmicutes在肥胖人群更常见;Bacteroidetes与餐后脂肪氧化相关。在人群研究中,白藜芦醇联合表没食子儿茶素-3-没食子酸酯亦影响超重男性肠道Bacteroidetes含量。
白藜芦醇对肠道微生物群组成的影响
Chaplin A,et al.Nutrients.2018
▸ 优化菌群代谢物,减少氧化三甲胺等
白藜芦醇通过富集产丁酸盐菌(如Ruminococcaceae),增加乙酸、丁酸等SCFAs水平,改善能量代谢和免疫调节。
除短链脂肪酸外,菌群还生成多种小分子。膳食胆碱、左旋肉碱和卵磷脂在肠道转为三甲胺,肝脏进一步生成氧化三甲胺(TMAO),其水平与心血管病、2型糖尿病和肥胖相关。RSV通过增加肠道拟杆菌种群可降低TMAO生成。
白藜芦醇作为一种多酚类天然化合物,不仅具有抗氧化、抗炎和代谢调节等多重生物活性,还能与肠道微生物群形成协同作用,共同影响机体健康。
其在小肠中被部分吸收后,会在结肠中进一步受到菌群的代谢转化,产生如二氢白藜芦醇(DHR)等具有更高生物活性的代谢物。这种“白藜芦醇—肠道菌群”双向作用模式,不仅使其代谢产物具备持久的生理效应,还通过重塑菌群结构、改善肠屏障功能、调节炎症反应和优化能量代谢,在肥胖、糖尿病、炎症性肠病、非酒精性脂肪肝以及心血管疾病等多种代谢与慢性病中发挥保护作用。
肠道微生物组和白藜芦醇在疾病中的协同作用
Gostimirovic M,et al.Int J Mol Sci.2023
1
改善肥胖与代谢综合征
白藜芦醇与肠道微生物群协同作用改善肥胖与代谢综合征,其核心在于同时作用于菌群结构与宿主代谢通路,从而降低全身炎症、优化能量代谢并强化肠—代谢轴的健康状态。
该协同过程既包含对白藜芦醇本身的代谢与再活化,也包含其对关键菌群与代谢物谱的定向调控,最终体现在体重、脂肪分布与代谢炎症标志物的综合改善。
▸ 下调厚壁菌门/拟杆菌门比例,增加产丁酸菌
协同作用机制方面,首先体现在菌群重塑:白藜芦醇能够显著下调与肥胖相关的厚壁菌门/拟杆菌门(F/B)比例,推动菌群向更有利于代谢健康的构成转变。
同时,促进产短链脂肪酸(SCFAs)的有益菌增殖,如Roseburia与Allobaculum,从源头提高丁酸等代谢物的生成潜力;并且抑制促炎与产内毒素菌的丰度,从而降低肠源性炎症负担与内毒素应激。这种双向调节使菌群生态趋于稳态,强化肠屏障与系统代谢的互促效应。
▸ 提升脂肪酸氧化,改善葡萄糖稳态
白藜芦醇通过激活AMPK/SIRT1信号通路,提升脂肪酸氧化效率并抑制脂肪合成相关过程,减少脂质在肝脏与内脏脂肪中的堆积。
此外,由菌群产生的关键代谢产物(以丁酸为代表)可促进肠促胰素GLP-1的分泌,继而改善胰岛素敏感性与葡萄糖稳态,形成“菌群代谢物—肠激素—宿主代谢”的有益联动。上述通路既缓解胰岛素抵抗,也有助于降低慢性低度炎症水平。
综合来看,白藜芦醇通过“菌群重塑+代谢通路调控”的协同模式,推动肥胖与代谢综合征的多维度改善,并在动物实验中获得一致性支持。
2
改善肠道炎症
白藜芦醇对炎症性肠病的潜在机制已被综述,包括强化肠屏障、抑制病原易位、改善菌群失衡、抑制TLR2/4-MyD88促炎通路、提升抗炎因子与二十烷酸等。
▸ 白藜芦醇保护结肠黏膜、降低炎症因子
研究显示,连续25天给予低剂量白藜芦醇可保护结肠黏膜、降低炎症因子,并增加乳酸杆菌与双歧杆菌、减少大肠杆菌与肠杆菌。长期(200天、饮食中0.025%)喂养小鼠降低体重丢失、疾病活动指数和组织损伤,并显著抑制IL-2、IFN-γ、GM-CSF等;菌群层面恢复α/β多样性,增加双歧杆菌,减少Dorea、Sutterella、Bilophila。
▸ 提高AKK菌丰度,提高α多样性
白藜芦醇还能恢复Akkermansia muciniphila丰度;该菌在IBD模型中下降,而补充其本身对结肠炎具保护作用。另一研究观察到补充白藜芦醇后Epsilonbacteraeota、放线菌、双歧杆菌和Rikenellaceae_RC9_gut_group上升,拟杆菌下降。白藜芦醇相关的菌群改善伴随SCFAs增加,总体而言,白藜芦醇对化学诱导的IBD具有抗炎和菌群重塑效应。
除IBD外,白藜芦醇对其他肠道炎症亦有益。多项研究表明,白藜芦醇可缓解断奶相关的氧化应激与炎症并改善菌群:以300 mg/kg(体重%)喂养28天可降低TLR4、IL-1β、TNF-α,提升小肠免疫球蛋白分泌;口服白藜芦醇抑制致病梭菌与大肠杆菌,促进乳酸杆菌与双歧杆菌增殖并提高α多样性;与相近剂量姜黄素联用保护作用更强。
白藜芦醇通过强化屏障、抗炎信号调控与菌群重塑,在多种肠道炎症中展现出保护效应。
3
缓解2型糖尿病
▸ 肠道屏障保护和协同作用机制
白藜芦醇通过上调紧密连接蛋白(如ZO-1与occludin)的表达,增强上皮屏障稳定性,减少内毒素由肠腔进入循环的机会,从而降低内毒素血症所致的代谢压力。由此可减轻慢性低度炎症对胰岛素信号通路的干扰,缓解胰岛素抵抗,并有助于维持葡萄糖稳态与代谢灵敏度的提升。
▸ 临床关联:
在糖尿病人群中,补充白藜芦醇(500 mg/天)与空腹血糖下降及胰岛素抵抗指数改善相关,提示对胰岛素敏感性的积极影响。上述代谢获益与肠道菌群多样性的提升相伴出现,表明白藜芦醇的临床效果可能部分由菌群生态改善与炎症缓解共同介导,从而在代谢管理中发挥辅助作用。
4
改善非酒精性脂肪肝
▸ 研究数据
白藜芦醇(50 mg/kg/day)显著降低小鼠肝脏甘油三酯(TG)含量和谷丙转氨酶(ALT)水平,与菌群β多样性改善相关。
▸ 作用机制
•肠道-肝脏轴调控:白藜芦醇减少产LPS的Desulfovibrio,降低门静脉LPS水平,缓解肝脏炎症。
•增加Akkermansia muciniphila,改善肠黏膜屏障,减少肝脂肪沉积。
•代谢改善:通过调节FXR/TGR5胆汁酸受体,减少肝脏脂质合成。
白藜芦醇对不同疾病状况的影响
Prakash V,et al.Int J Mol Sci.2024
5
改善心血管疾病
白藜芦醇是一种酚类化合物,已证实具有降压作用。其降低收缩压的效应与基线BMI呈正相关,尤其在高剂量(≥300 mg/d)及糖尿病人群中更显著;后续研究亦证实其对收缩压与舒张压均有益。在大鼠模型中,肾动脉狭窄与RAS激活导致肾血管性高血压和心肥大;RSV单用即可降低收缩压与全心肥大,且作用独立于卡托普利。
▸ TMAO代谢抑制
白藜芦醇通过干预肠道菌群代谢通路,抑制其将胆碱转化为三甲胺氧化物(TMAO),这一代谢产物被认为是动脉粥样硬化的重要促进因子。
与此同时,白藜芦醇能够增强胆汁酸的生物合成与循环利用,该过程依赖于FXR信号通路的激活,从而促进胆固醇代谢与排泄,间接降低TMAO的生成与血浆水平,为心血管保护提供代谢层面的支持。
▸ 抗炎作用
白藜芦醇通过调节菌群结构减少促炎菌群(如Clostridium)的丰度,并促进短链脂肪酸(SCFAs)产生菌群的生长与活性,这些有益代谢产物可改善肠道环境、抑制炎症介质释放。
白藜芦醇还能通过降低内毒素水平与缓解氧化应激,减少血管内皮细胞的炎症反应,从而改善血管功能,减轻慢性炎症对心血管系统的不良影响。
6
白藜芦醇与生活质量
除了在患病人群中表现出一定的治疗和改善效果之外,白藜芦醇在正常健康个体中同样展现出积极的生理调节功能。它不仅能够维持机体内环境的平衡,还有助于支持代谢稳定与整体健康状态的巩固。
▸ 改善睡眠质量、对记忆具有一定保护作用
在健康人群的研究中,早期动物实验与临床结果存在差异,尤其在认知、情绪和睡眠方面改善不明显。然而,较新的临床研究显示,睡前单剂量14 mg 白藜芦醇可显著改善非快速眼动睡眠质量与休息感。
日本已有含白藜芦醇(RSV)的专利产品被用于改善睡眠。针对65–93岁久坐人群的研究发现,连续90天补充RSV(1000 mg/d)可提升精神运动速度,但对整体认知无显著影响。
其他研究在老年或绝经后女性中观察到执行功能和记忆域的改善,大多在连续补充两周后出现。在细胞水平上,这可能与RSV激活多种涉及细胞凋亡、存活、突触可塑性和去乙酰化酶(SIRT)等信号通路有关。同时,RSV可减少淀粉样前体蛋白积累,促进空间记忆与海马神经发生,从而被认为在阿尔茨海默病预防中具有潜在安全性与有效性。在绝经后女性中,含RSV的膳食补充剂能缓解情绪波动与认知减退。
▸ 缓解过敏性鼻炎,改善生活质量
持续14周补充(75 mg,每天两次)改善了围绝经期女性的植物神经症状(潮热、睡眠紊乱、出汗、情绪波动),提升了生活质量。
由于白藜芦醇对雌激素受体具有亲和力,研究者曾担心其对乳腺与子宫内膜的潜在风险。然而,临床结果表明RSV摄入与乳腺癌或子宫内膜增生无关。此外,连续治疗60天后可显著减少心绞痛发作并降低硝酸甘油使用需求;在鼻喷剂形式下,RSV与羧甲基-β-葡聚糖联合可缓解过敏性鼻炎及普通感冒症状,如鼻塞、流涕、咳嗽等。
总体而言,白藜芦醇通过与肠道微生态的动态互作,构建了以代谢、免疫与信号调控为核心的系统性健康调节机制,为多疾病干预提供了新的生物学基础。
▸ 当前补充白藜芦醇存在的不足
当前补充白藜芦醇虽然在多种代谢性、炎症性及神经退行性疾病中展现出潜在的治疗价值,但其临床应用仍受到多方面限制,主要不足可总结如下:
⑴口服生物利用度低
白藜芦醇在体内易被快速代谢为硫酸或葡萄糖醛酸结合物,导致血浆中游离形式浓度极低。其吸收虽迅速,但广泛的首过代谢和肠肝循环显著限制了系统暴露水平,使实际可利用量远不足以发挥预期的生理效应。
⑵体内稳定性差与易降解性
白藜芦醇对光、热及pH敏感,暴露于空气或消化液中易发生氧化、异构化与分解反应,导致有效成分在制剂及消化过程中显著损失,影响药效持久性与安全性。
⑶剂量依赖性明显,疗效不稳定
不同研究使用的剂量差异较大(从数十毫克至上千毫克/日),但个体吸收率和响应差异显著。即使在相似剂量下,个体间因代谢状态和基因差异而表现出高度变异,造成疗效可重复性不足。
⑷与肠道微生物群相互作用复杂性高
虽然白藜芦醇通过调节菌群改善宿主代谢和免疫功能,但个体间菌群差异显著,使其协同作用难以标准化。此外,抗菌特性在高剂量下可能造成菌群失衡,其最佳调节范围仍需进一步界定。
⑸代谢产物活性复杂
白藜芦醇在肠道被转化为多种代谢物(如二氢白藜芦醇和lunularin),其生物活性虽可能更强,但动力学特征不稳定、滞留时间有限,同时其贡献比例和作用机制尚未完全阐明,增加了临床验证的复杂性。
▸ 更好地补充白藜芦醇的方法
鉴于目前白藜芦醇在补充过程中仍存在生物利用度低、稳定性差及吸收不完全等方面的限制,我们在此对相关改进策略进行了系统梳理和总结。这些方法有助于优化其吸收和代谢效率,从而实现更合理、更有效的补充应用。
①给药补充策略的优化
利用纳米颗粒封装药物是提升溶解度、稳定性和生物利用度的有效手段。通过纳米颗粒、脂质体、固体分散体、环糊精包合物、微乳及自乳化系统等递送技术,可显著提高白藜芦醇的溶解性和血浆暴露水平,优化其药代动力学特性。
②注意补充白藜芦醇的衍生物或前体物质
白藜芦醇为疏水性分子,水溶性差,口服吸收率低。通过设计可溶性衍生物或亲水性前体(如磷酸酯、葡萄糖苷、硫酸盐或甲基化衍生物),可显著提升其在胃肠中的溶解度和吸收效率。
此外,白藜芦醇易被氧化、异构化并迅速代谢为结合物,活性维持时间短。化学修饰如甲基化(如紫檀芪)或氟代、羟基位点替换可减缓代谢速度,增强稳定性和细胞膜通透性。
③利用菌群代谢促进活性转化
通过调整膳食结构、增加膳食纤维摄入或联合益生元、益生菌的干预措施,可进一步促进肠道菌群功能活性,增强其对白藜芦醇的代谢转化效率,使其生成更多高活性代谢产物。这些代谢物不仅能提升白藜芦醇的抗炎和抗氧化能力,还能延长其作用时间,从而增强整体生物效益。
④个体化肠道微生物群检测与调控
通过粪便菌群测序等手段,了解个体肠道菌群的整体结构、优势菌群和多样性情况。这有助于判断个体在白藜芦醇吸收和代谢过程中的潜在差异,因为肠道菌群在白藜芦醇的化学转化中起到双向调控作用(既可能通过代谢生成更有活性的代谢物,也可能助推白藜芦醇的降解)。
针对不同个体肠道菌群组成存在的差异,可采用更具针对性的干预策略,实现白藜芦醇与菌群间的精确协同。通过分析和识别主导代谢菌群,优化其代谢途径、增强关键酶活性,可提高白藜芦醇转化率与利用率,减少个体间响应差异,从而实现更稳定、一致和持久的疗效。
⑤联合营养素补充
将白藜芦醇与一些营养成分联合使用可以提高药物的水溶性、稳定性和生物利用度。研究报告了白藜芦醇和大豆分离蛋白的络合,可提高多酚的溶解度及其抗氧化活性。
还制备了白藜芦醇和蛋白质之间的其他复合物,提高了药物的稳定性,特别是胶原蛋白,β-乳球蛋白提高了白藜芦醇的溶解度和光稳定性,以及酪蛋白酸盐或酪蛋白酸-葡聚糖,保护药物免于异构化。
▸ 注意:白藜芦醇与药物的互作
白藜芦醇具备多种生物活性,因而在体内可能与不同类型的药物发生相互作用,影响药物的代谢、吸收或疗效。
因此,在补充白藜芦醇时应保持谨慎,尤其是与处方药或长期服药者。为便于了解和避免潜在风险,我们将常见相互作用及注意事项总结如下表:
白藜芦醇,从葡萄酒中的天然多酚,到现代科学不断揭示的“青春因子”, 它展现出显著的健康益处,包括抗氧化、抗炎、降脂、心血管保护、神经保护以及延缓衰老等多重生物活性。通过提升身体内环境的平衡,白藜芦醇为我们的健康提供了强有力的支持。
但健康从来不是依靠某一种成分的“速成”,而是身体多个系统共同协作的结果。肠道微生物群在白藜芦醇的代谢中扮演着重要角色。这些微生物不仅能够将白藜芦醇转化为更易吸收的代谢物,还能使白藜芦醇代谢物活性更高。同时白藜芦醇能够促进有益菌群的生长,调整肠道微生物群的结构,形成互利共生的良性循环。进而帮助改善健康状况,包括减轻炎症、缓解代谢障碍以及促进肠道健康。
未来,个性化健康的重要性愈发突显。随着科学的发展,我们有望根据个人的肠道微生物组特征制定更为精准的营养补充方案。这样的个性化方法不仅能提升白藜芦醇及其他营养成分的吸收和效果,还能预测和预防与健康相关的风险。这种科学与智能的健康管理方式,将使每个人的身体需求都得到满足,实现真正意义上的“懂身体”。
因此,与其追求数量的“更多”,不如追求质量上的“更懂身体”。让饮食、微生物和科学在日常生活中相互交融,通过科学的补充方式,让白藜芦醇的能量在微小与持久之间,续写身体和谐健康篇章。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Radeva L, Yoncheva K. Resveratrol-A Promising Therapeutic Agent with Problematic Properties. Pharmaceutics. 2025 Jan 19;17(1):134.
Gostimirovic M, Rajkovic J, Bukarica A, Simanovic J, Gojkovic-Bukarica L. Resveratrol and Gut Microbiota Synergy: Preventive and Therapeutic Effects. Int J Mol Sci. 2023 Dec 17;24(24):17573.
Prakash V, Bose C, Sunilkumar D, Cherian RM, Thomas SS, Nair BG. Resveratrol as a Promising Nutraceutical: Implications in Gut Microbiota Modulation, Inflammatory Disorders, and Colorectal Cancer. Int J Mol Sci. 2024 Mar 16;25(6):3370.
Yao M, Fei Y, Zhang S, Qiu B, Zhu L, Li F, Berglund B, Xiao H, Li L. Gut Microbiota Composition in Relation to the Metabolism of Oral Administrated Resveratrol. Nutrients. 2022 Feb 28;14(5):1013.
Chen X, Zhang J, Yin N, Wele P, Li F, Dave S, Lin J, Xiao H, Wu X. Resveratrol in disease prevention and health promotion: A role of the gut microbiome. Crit Rev Food Sci Nutr. 2024;64(17):5878-5895.
Salehi B, Mishra AP, Nigam M, Sener B, Kilic M, Sharifi-Rad M, Fokou PVT, Martins N, Sharifi-Rad J. Resveratrol: A Double-Edged Sword in Health Benefits. Biomedicines. 2018 Sep 9;6(3):91.
Chaplin A, Carpéné C, Mercader J. Resveratrol, Metabolic Syndrome, and Gut Microbiota. Nutrients. 2018 Nov 3;10(11):1651.
Cai TT, Ye XL, Li RR, Chen H, Wang YY, Yong HJ, Pan ML, Lu W, Tang Y, Miao H, Snijders AM, Mao JH, Liu XY, Lu YB, Ding DF. Resveratrol Modulates the Gut Microbiota and Inflammation to Protect Against Diabetic Nephropathy in Mice. Front Pharmacol. 2020 Aug 19;11:1249.
Zhang B, Xu Y, Lv H, Pang W, Wang J, Ma H, Wang S. Intestinal pharmacokinetics of resveratrol and regulatory effects of resveratrol metabolites on gut barrier and gut microbiota. Food Chem. 2021 Sep 30;357:129532.
Koushki M, Amiri-Dashatan N, Ahmadi N, Abbaszadeh HA, Rezaei-Tavirani M. Resveratrol: A miraculous natural compound for diseases treatment. Food Sci Nutr. 2018 Oct 26;6(8):2473-2490.
Thapa SB, Pandey RP, Park YI, Kyung Sohng J. Biotechnological Advances in Resveratrol Production and its Chemical Diversity. Molecules. 2019 Jul 15;24(14):2571.
Wang P, Gao J, Ke W, Wang J, Li D, Liu R, Jia Y, Wang X, Chen X, Chen F, Hu X. Resveratrol reduces obesity in high-fat diet-fed mice via modulating the composition and metabolic function of the gut microbiota. Free Radic Biol Med. 2020 Aug 20;156:83-98.
Springer M, Moco S. Resveratrol and Its Human Metabolites-Effects on Metabolic Health and Obesity. Nutrients. 2019 Jan 11;11(1):143.
Farkhondeh T, Folgado SL, Pourbagher-Shahri AM, Ashrafizadeh M, Samarghandian S. The therapeutic effect of resveratrol: Focusing on the Nrf2 signaling pathway. Biomed Pharmacother. 2020 Jul;127:110234.
Li F, Han Y, Wu X, Cao X, Gao Z, Sun Y, Wang M, Xiao H. Gut Microbiota-Derived Resveratrol Metabolites, Dihydroresveratrol and Lunularin, Significantly Contribute to the Biological Activities of Resveratrol. Front Nutr. 2022 May 11;9:912591
谷禾健康

Desulfovibrio,脱硫弧菌,也被称为硫酸盐还原菌(SRB)属于变形菌门。这类细菌比较受关注,其中一个重要原因是这组细菌可以“呼吸”硫酸盐而不是氧气。由于硫化氢(H2S)的产生,SRB 被认为会对肠道上皮具产生毒性,导致胃肠道疾病。
脱硫弧菌属无处不在,可以在土壤、水和污水中以及动物和人类的消化道中找到。它们是硫酸盐还原性、非发酵性、厌氧性、革兰氏阴性杆菌,细胞直径约为 0.7 微,具有中温生长模式,在25至40摄氏度之间的温度下生长速率理想。
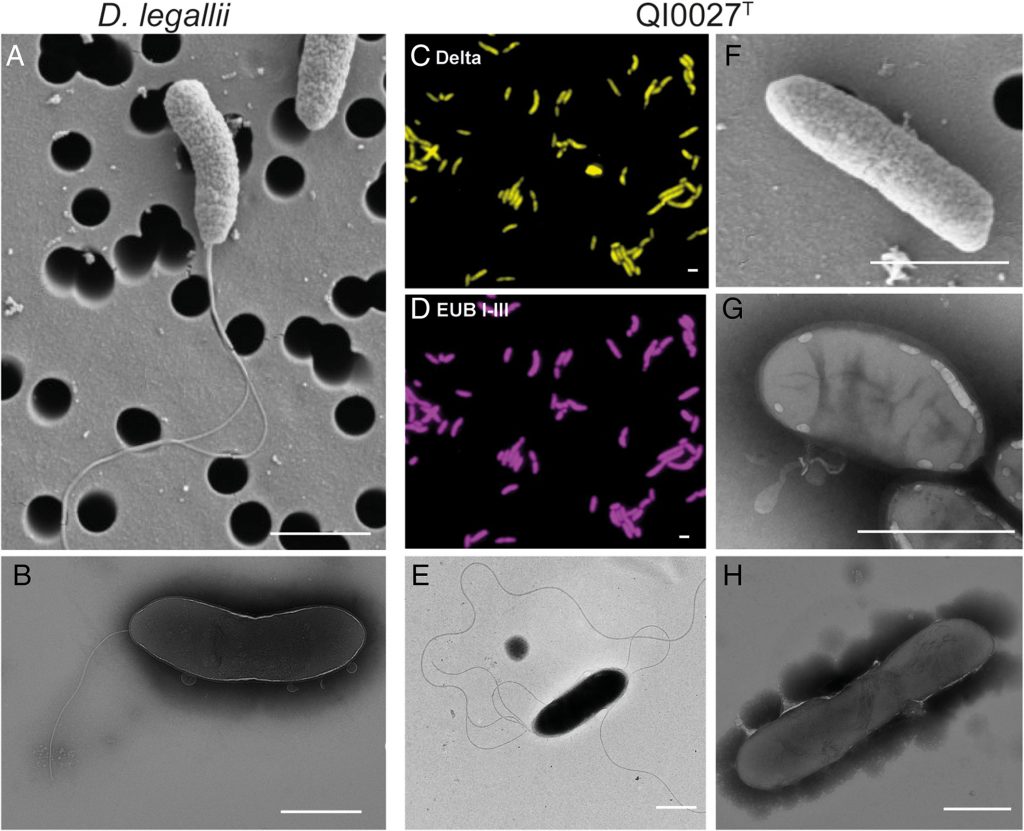

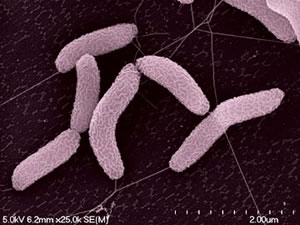
脱硫弧菌又被称为硫酸盐还原菌,由于其金属腐蚀能力,从而导致工业中的许多健康和安全问题。然而,该生物体也显示出生物修复的潜力,因为它可以对土壤中的污染物进行厌氧转化。
脱硫弧菌的物种被确定为生物修复剂,它能减少铀 (VI)、铬 (VI) 和铁 (III) 等几种有毒金属,在环境中,脱硫弧菌具有非常有用和有害的潜力。
结构和分类
由于惰性生长模式持续 4 至 7 天,因此很难通过常规方法从临床标本中分离。出于这个原因,所以目前通常使用分子技术鉴别该物种。
到目前为止,四种脱硫弧菌种均与人类感染有关(主要是腹部):
Desulfovibrio. fairfieldensis、
Desulfovibrio. desulfuricans、
Desulfovibrio. piger
Desulfovibrio. vulgaris
据不完全统计,SRB已有12个属40多个种 ,SRB的分类学研究进展比较缓慢。已知的SRB从生理学上分为两大亚类。
Ⅰ类:如脱硫弧菌属Desulfovibrio、脱硫单胞菌属Desulfomonas、脱硫叶菌属Desulfobulbus和脱硫肠状菌属Desulfotomaculum,其特点是可利用乳酸、丙酮酸、乙醇或某些脂肪酸为碳源及能源,将硫酸盐还原为硫化氢。
Ⅱ类:如脱硫菌属Thiobacillus、脱硫球菌属Desulfococcus、脱硫八叠球菌属Sporosarcina和脱硫线菌属Desulfotalea,它们的特别之处是可以氧化脂肪酸,并将硫酸盐还原为硫。随着研究的进展,陆续又有一些新的种属被命名。
由于脱硫弧菌的历史重要性,已经对两种菌株进行了基因组测序,一种正在进行中。这些菌株包括Desulfovibrio desulfuricans G20(已完成)、Desulfovibrio vulgaris subsp.
两个完全测序的基因组都显示Desulfovibrio具有一条染色体长度超过3 Mbp。两次测序还发现蛋白质的数量都在 3000 以上。
生态属性
培养和分离
大多数脱硫弧菌可以耐受少量暴露于空气中;然而,电镀介质中的氧气可以延迟或抑制该菌落的生长。因此,如果培养该菌,操作和生长应在厌氧生长室中进行。即使塑料物品(培养皿、eppendorf 管、移液管吸头、锥形管等)有氧气,也会阻碍Desulfovibrio. vulgaris和其他脱硫弧菌菌株生长。因此,塑料制品在使用前应在厌氧室内“脱气”至少 7天。
如果将含有合适碳源和硫酸盐的细菌盐混合物与接种物在 pH 7.5下厌氧培养,则会产生脱硫弧菌属。通过添加化学还原剂,Eh应低于 -150 mV。亚铁盐过量存在表明硫酸盐通过变黑而减少脱硫弧菌属的共养生活方式。主要与氢营养型产甲烷菌有关。
环境特性
硫酸盐还原菌(例如Desulfovibrio spp. 和Desulfotomaculum spp.)主要在深层地下水中产生气味,释放硫化氢。这些细菌还在热分层的湖泊和水库的厌氧低水层中产生硫化物气味。由其它细菌,尤其是产生的“沼泽”气味假单胞菌和单胞菌。这种现象是由在厌氧条件下具有强烈气味的有机硫化物(例如二甲基多硫化物)引起的。
Desulfovibro desulfuricans菌株为研究汞甲基化提供了一个极好的机会,因为它是典型的厌氧嗜温细菌,对 pH 和盐度具有广泛的耐受性,它也能在富马酸盐作为电子受体的情况下生长良好,从而防止硫化物对汞甲基化的抑制。
脱硫弧菌能利用乙醇或乳酸还原硫酸盐产生乙酸代谢产物。其中Desulfovibrio sp.strain JY菌株在淡水和海水环境中均具有很强的产电能力,最大电流输出密度可达243.2mA/m2。该菌株是目前报道的首例电活性脱硫弧菌,可为探索微生物胞外电子传递在腐蚀中的作用提供模式菌株,进而为海洋金属腐蚀防控技术提供策略。
与人体健康相关的双重特性
约 50% 人的口腔和肠道中存在Desulfovibrio,也就是硫酸盐还原菌 (SRB)。它在肠道中茁壮成长,释放硫化氢 (H2S) 作为硫酸盐还原的产物。
在厌氧条件下微生物将硫酸盐还原为H2S的过程称为反硫化作用。参与这一过程的微生物称为硫酸盐还原菌。反硫化作用具有高度特异性,主要是由脱硫弧菌属(Desulfovibrio)来完成。如脱硫脱硫弧菌(D.desulfuricans)是一典型反硫化作用的代表菌,其反应式为:
C6H12O6+3H2SO4→6CO2+6H2O+3H2S+能量
产生的H2S与铁化学氧化产生的Fe2+形成FeS和Fe(OH)2,这是造成铁锈蚀的主要原因。
H2S作为第三种气体信号分子广泛参与动物体内的多种生化反应,是胃肠道内一种重要的生理分子,调节细胞和组织的生理功能。硫化氢参与了对消化系统许多疾病的自然预防,但这种分子在胃肠道中的活性取决于这种气体介质在特定组织中的浓度。
肠道细菌中包括Desulfovibrio是胃肠道硫化氢的主要生产者,细菌释放的硫化氢扩散到上皮下区域由肠细胞和结肠细胞控制。这种相互作用对调节粘膜功能和肠道内环境很重要。
肠道炎症
H2S在肠道炎症中的作用是复杂的,有时是矛盾的。
一些实验和临床数据表明H2S与慢性结肠疾病和大肠炎症有关。同样,一些脱硫弧菌物种的存在与慢性牙周炎、细胞死亡和炎症性肠病如溃疡性结肠炎和克罗恩病有关,或者至少增加复发的风险。
但是同时也有研究表明H2S可以直接促进血管生成,其对胃肠道溃疡愈合的有益作用可能部分是由于溃疡边缘的粘膜血流增强,这对溃疡修复至关重要。
内脏敏感性
H2S在刺激肠道内脏敏感性方面也具有双重作用。
硫化氢可以调节胃肠道的伤害敏感性,对脊髓和脊髓上内脏运动反应产生抗伤害作用。
硫化氢同时也可以通过激活T型钙通道对结肠扩张引起的内脏运动反应具有促痛作用。锌的螯合作用通常通过硫化氢与T型钙通道结合,似乎是结肠传入激活的关键步骤。硫化氢的促伤害作用来自硫化氢直接激活空肠肠系膜传入。
硫化氢通过几个确定的分子靶点调节胃肠道的伤害性反射,包括:
T型电压门控钙通道(VGCC)
TRPV1受体
TRPA1受体
信号分子 / 能量来源
H2S还可以作为线粒体的信号分子或能量来源。
通过使用氢气,SRB 有助于高效能量获取和发酵细菌产生的底物的完全氧化。因此,SRB 可以在肠道微生物组中发挥双重作用。来自健康个体的相对较少的菌株已被表征。在从西方国家获得的样本中,Desulfovibrio. piger被描述为最丰富的。
肥胖/代谢紊乱
一项研究来自广东肠道微生物组计划 (GGMP) 的广泛的肠道菌群数据集,该数据包含来自中国广东省 14 个地区的 7009 个人,研究结果表明Desulfovibrio piger 可能是广东人群肠道中最常见和最丰富的Desulfovibrio物种。
而且Desulfovibrio的主要 sub-OTU 与细菌群落多样性呈正相关。Desulfovibrio与Oscillospira,Coprococcus,瘤胃球菌属,Akkermansia,罗斯氏,Faecalibacterium和Bacteroides呈正相关,而与有害菌属负相关,例如梭菌属、埃希氏菌属、克雷伯氏菌属等。
Desulfovibrio的相对丰度与体重指数、腰围、甘油三酯水平和尿酸水平呈负相关。
另有研究也表明,肥胖和超重儿童Desulfovibrio显著低于正常体重儿童。
帕金森
对 20 名帕金森 患者和 20 名健康对照的粪便进行常规和定量实时 PCR 分析表明,所有帕金森患者的肠道微生物群中都含有脱硫弧菌,并且这些细菌在帕金森患者中的含量高于健康对照。此外,脱硫弧菌物种的浓度与帕金森的严重程度相关。脱硫弧菌产生硫化氢和脂多糖,可能诱导α-突触核蛋白的寡聚化和聚集。
肝脏脂质代谢
宏基因组学显示富含黄芪多糖 的D. vulgaris可能通过产生乙酸和调节小鼠肝脏脂质代谢来有效减轻肝脏脂肪变性。
关节炎
临床报告了一例由脱硫弧菌引起的髋关节化脓性关节炎。患者接受了清创术,随后进行了靶向抗生素治疗,感染消退。
结直肠癌
D. longreachensis 分别在 III/IV 期和 0 期结直肠癌中增加。
系统性硬化症
系统性硬化症患者的肠道微生物群的特征是促炎性有害属增加,尤其是Desulfovibrio。
妊娠期糖尿病
Desulfovibrio在妊娠期糖尿病女性中大量存在。
IBS
便秘型肠易激综合征患者肠道微生物群中的Desulfovibrio高于健康人。
菌血症
Desulfovibrio fairfieldensis和D. desulfuricans与菌血症有关。
但是这些样本量、研究对象和部分缺乏健康对象参数。可能需要进行大规模的队列分析。
总结
Desulfovibrio是一类还原硫酸盐产生H2S的厌氧菌,内源性的H2S会毒害肠道上皮细胞,会造成肠道敏感性,肠漏或者腹痛等,多项临床研究证实脱硫弧菌属数量的增多是息肉和溃疡性结肠炎疾病的一个重要特征。
随着时间的推移,粘膜下层持续暴露于炎症和免疫诱因会导致身体产生抗体。抗体是识别和对抗病毒和细菌的特殊蛋白质。这些抗体还可以开始识别和攻击宿主的身体组织。
谷禾大数据显示,如果脱硫弧菌同时和几个其他的菌超标,如,肺炎链球菌、克雷伯氏菌、嗜胆菌属、甲烷短杆菌也超标,对应菌群代谢产物如胆汁酸,对甲酚等代谢问题,引发腹胀,便秘和情绪等问题。也有研究证实便秘组克里斯滕森菌(christensenella)和脱硫弧菌(desulfovibrio)的相对丰度较高。
但值得注意的是,脱硫弧菌一般具有产生乙酸,消耗乳酸,和具有成为电子受体特征中的一种或多种。由于惰性脱硫弧菌细菌的这些具体特征对于与Faecalibacterium prausnitzii (F.prausnitzii,普氏栖粪杆菌,又名:普拉梭菌)的共生关系非常重要,我们知道,普拉梭菌与其它菌相比,会产生更高的乳酸,在生产更多乳酸时为脱硫弧菌提供了更多的底物。因此,脱硫弧菌与普拉梭菌同时存在,将有助于肠道产生更多的丁酸,从而用于治疗或预防与丁酸水平降低相关的任何疾病。
因此,一个菌的好坏及其健康特性,需要将其置于整个微生物生态中去综合考量,通过整个生态菌群构成和代谢来判别其丰度阈值和功能特性。
主要参考文献
Cabrera G, Perez R, Gomez JM, Abalos A, Cantero D. “Toxic effects of dissolved heavy metals on Desulfovibrio vulgaris and Desulfovibrio sp. strains.” J Hazard Mater. 2005 Dec 28.
Devereux R, He SH, Doyle CL, Orkland S, Stahl DA, LeGall J, Whitman WB. “Diversity and origin of Desulfovibrio species: phylogenetic definition of a family.” Journal of Bacteriology. 1990 Jul;172(7):3609-19.
ITQB. Instituta de Technologia Quimica e Biologica. Universidade Nova de Lisboa. “Desulfovibrio gigas.”
NCBI. Genome Project > Desulfovibrio desulfuricans G20 project at DOE Joint Genome Institute.
Pires RH, Venceslau SS, Morais F, Teixeira M, Xavier AV, Pereira IA.”Characterization of the Desulfovibrio desulfuricans ATCC 27774 DsrMKJOP Complex-A Membrane-Bound Redox Complex Involved in the Sulfate Respiratory Pathway.” Biochemistry. 2006 Jan 10;45(1):249-62.
Verstreken I, Laleman W, Wauters G, Verhaegen J. Desulfovibrio desulfuricans bacteremia in an immunocompromised host with a liver graft and ulcerative colitis. J Clin Microbiol. 2012 Jan;50(1):199-201. doi: 10.1128/JCM.00987-11. Epub 2011 Nov 9. PMID: 22075582; PMCID: PMC3256723.
Xu Y, Shao M, et al. Antipsychotic-induced gastrointestinal hypomotility and the alteration in gut microbiota in patients with schizophrenia. Brain Behav Immun. 2021 Sep 24;99:119-129. doi: 10.1016/j.bbi.2021.09.014.
Murros KE, Huynh VA, Takala TM, Saris PEJ. Desulfovibrio Bacteria Are Associated With Parkinson’s Disease. Front Cell Infect Microbiol. 2021 May 3;11:652617. doi: 10.3389/fcimb.2021.652617. PMID: 34012926; PMCID: PMC8126658.
Marquis TJ, Williams VJ, Banach DB. Septic arthritis caused by Desulfovibrio desulfuricans: A case report and review of the literature. Anaerobe. 2021 Aug;70:102407. doi: 10.1016/j.anaerobe.2021.102407. Epub 2021 Jun 18. PMID: 34153468.
Chen YR, Jing QL, Chen FL, Zheng H, Chen LD, Yang ZC. Desulfovibrio is not always associated with adverse health effects in the Guangdong Gut Microbiome Project. PeerJ. 2021 Aug 18;9:e12033. doi: 10.7717/peerj.12033. PMID: 34466295; PMCID: PMC8380029.