-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
很多克罗恩病患者都有过相似的困惑:炎症指标似乎有所下降,腹痛和腹泻却不一定完全好转;又或者明明已经规律治疗,吃东西后仍容易胀痛,肠道慢慢变得狭窄。这样的经历并不意味着患者做得不够好。而是克罗恩病涉及免疫、肠黏膜屏障、遗传、环境及肠道微生物等多重因素,而肠道纤维化正是其中最令人棘手的环节之一。
可以把肠道想象成一条既要消化食物、又要维持屏障功能以抵御细菌和外界刺激的长廊。它的内壁需要足够柔软,才能随着食物通过而舒张;也需要足够坚固,才能把细菌和外界刺激挡在合适的位置。反复炎症就像反复受伤。正常的修复本应在伤口愈合后慢慢停下,但当修复信号持续存在时,组织会不断沉积类似“疤痕”的细胞外基质,肠壁逐渐变厚、变硬,甚至形成狭窄——这一过程就是肠道纤维化。
越来越多的实验和临床线索提示,微生物失调可能通过多条路径参与肠道纤维化进程。在克罗恩病(CD)中,常可观察到微生物多样性下降、部分促炎相关菌群相对增多,以及产短链脂肪酸、支持屏障功能的菌群减少。此类改变并不意味着某一种细菌能够单独导致肠道纤维化,更可能反映了微生物、宿主免疫、屏障状态和局部组织环境之间失衡后的相互放大。
屏障受损后,脂多糖、鞭毛蛋白和细胞壁成分等微生物信号更容易接触肠壁深层细胞,并通过Toll样受体、NOD样受体等模式识别通路激活上皮细胞、成纤维细胞及免疫细胞;随后,TGF-β、TL1A/DR3、IL-33/ST2、IL-6/STAT3等信号可推动成纤维细胞活化和细胞外基质沉积。与此同时,微生物还可通过影响巨噬细胞极化、T细胞反应、氧化应激和肠系膜脂肪重塑,构建持续存在的促纤维化微环境。
尤其是黏附侵袭性大肠杆菌(AIEC)等特定菌株,因其黏附上皮、侵入细胞、形成生物膜及维持慢性刺激的能力,常在CD狭窄相关病灶中受到关注。微生物代谢物同样可能是连接菌群与肠壁重塑的重要媒介:短链脂肪酸具有维持屏障和调节免疫的潜在保护作用,而L-天冬氨酸、三甲胺及氧化应激相关信号则被视为值得进一步验证的促纤维化线索。
本文围绕克罗恩病肠道纤维化与肠道微生物组的关系,概述纤维化的病理基础及其与慢性炎症的联系,分析微生物失调、屏障损伤、免疫异常、爬行脂肪和代谢物改变在纤维化中的作用,并讨论AIEC等潜在致病菌及关键宿主信号通路。进一步评估饮食和代谢调节、功能菌干预、粪便微生物移植、抗黏附治疗及宿主信号靶向等策略的潜力与局限。肠道微生物群是理解CD纤维化的重要线索和潜在靶点,而非单一病因或成熟疗法;未来仍需高质量临床研究明确患者分型、作用机制及获益人群,以推动精准、安全的抗纤维化治疗。
什么是克罗恩病肠道纤维化?
克罗恩病中的肠道纤维化,是肠道在长期、反复炎症损伤后发生的异常修复过程:成纤维细胞和肌成纤维细胞持续被激活,产生并沉积过多胶原蛋白、纤维连接蛋白等细胞外基质,使肠壁逐渐增厚、变硬、失去弹性,并最终造成肠腔狭窄、梗阻。
关于肠道狭窄机制的原理图
编辑
doi: 10.1177/17562848221104951.
纤维化不是一次炎症,而是修复失控
肠道纤维化,可以从一个贴近生活的角度理解:皮肤擦伤后,身体会启动修复:先止血,再清理受损组织,随后长出新的组织。大多数时候,伤口会慢慢收口,修复程序也会逐步关闭。肠道的修复过程同样如此,只是它面对的环境更加复杂:肠腔里持续有食物、细菌和代谢物通过,肠壁每天都要经历伸缩和摩擦。当炎症反复出现,修复系统就可能长期处在“还没有结束”的状态,最终把本来灵活的肠壁修成了僵硬的狭窄段。
肠道纤维化的病理生理框架:超越慢性炎症
编辑
Kim JH,et al.Intest Res.2026
肠道纤维化的机制
克罗恩病相关肠道纤维化是一个复杂且动态的病理过程,涉及多种因素之间的相互作用与共同影响。深入理解这些因素及其作用机制,对于明确纤维化的发生发展,并开发更具针对性的治疗方法至关重要。
克罗恩病肠道纤维化的主要病理机制
编辑
doi: 10.3390/jcm14124060.
导致肠道纤维化的主要病理机制及因素
编辑
doi: 10.3390/jcm14124060.
(1)参与肠道纤维化的细胞
成纤维细胞、肌成纤维细胞、平滑肌细胞及巨噬细胞等共同参与纤维化。慢性炎症和生长因子刺激可促使这些细胞活化、增殖,并增加胶原等细胞外基质的生成。
活化的成纤维细胞可转化为表达α-SMA的肌成纤维细胞;狭窄部位的肌成纤维细胞更倾向于促进胶原沉积,且MMP3表达降低,不利于基质降解。平滑肌细胞增生、肥大及其与周围间充质细胞的相互作用,也会加重肠壁重塑。
(2)肠道纤维化的分子机制
IL-1、IL-4、IL-6、IL-13、IL-17和IL-33等促炎、促纤维化细胞因子,可促进成纤维细胞活化、上皮—间充质转化及胶原沉积;IL-10、IL-22等则具有一定抗纤维化作用。
TGF-β是核心调节因子,可通过Smad2/3通路上调Ⅰ型胶原和纤维连接蛋白表达。PDGF、CTGF和bFGF进一步促进间充质细胞的迁移、增殖和基质合成。
(3)细胞外基质的改变
细胞外基质过度沉积是纤维化和狭窄形成的直接基础。慢性炎症下,胶原、纤维连接蛋白等成分持续累积;虽然基质金属蛋白酶(MMPs)参与基质降解,但其与基质金属蛋白酶组织抑制剂(TIMPs)之间的失衡总体倾向于减少基质降解、维持基质稳定。组织硬度增加又可刺激细胞继续沉积基质,形成正反馈。
(4)爬行脂肪的作用
爬行脂肪是肠系膜脂肪组织包绕病变肠段的表现,其中的脂肪细胞和免疫细胞可分泌IL-6、TGF-β、TNF-α等介质,招募巨噬细胞和T细胞,并促进细胞外基质沉积。其与肠道炎症及细菌转位相互作用,持续维持局部促炎和促纤维化环境。
注:爬行脂肪(creeping fat)是克罗恩病的典型肠系膜改变,指肠系膜脂肪组织异常增生,并逐渐向病变肠段表面延伸、包裹肠壁,有时可覆盖肠道周径的50%以上。
(5)肠道微生物群与肠道纤维化
肠道菌群失调和屏障损伤可使细菌成分进入肠壁,通过TLR、NOD2和NF-κB等通路激活免疫细胞及肌成纤维细胞。AIEC可借助炎症环境持续定植,并通过IL-33/ST2等信号促进纤维化。
菌群代谢异常,尤其是产短链脂肪酸菌减少,也可能削弱屏障保护和免疫调节,从而促进纤维化进展。
谁在制造“疤痕”:成纤维细胞与肌成纤维细胞
狭窄肠段中存在不同的间充质细胞亚群,其中部分细胞表现出较强的促纤维化特征;单细胞研究还提示,某些成纤维细胞亚群与细胞外基质重塑相关。这说明纤维化并不是一群完全相同的细胞在做同一件事,而是多个细胞群体在不同位置、不同时间共同参与。
• 成纤维细胞:它们负责合成胶原蛋白、纤维连接蛋白等细胞外基质,并参与组织修复。
• 肌成纤维细胞:既制造基质,也产生收缩力,改变局部组织结构。短期活化有助于修复,但长期活化可能使肠壁增厚、变硬并收紧,促进狭窄形成。
✔ 对患者而言,这个认识有一个重要意义:未来治疗未必只是“全面抑制成纤维细胞”。更理想的方向可能是识别真正处于异常活化状态的细胞,阻断它们收到的错误信号,同时保留正常修复所需要的能力。
细胞因子是“传递信号”
肠道细胞并非独立运作,而是通过细胞因子传递信息,识别损伤、招募免疫细胞并启动修复。
• 转化生长因子β1(TGF-β1):在纤维化过程中,转化生长因子β1(TGF-β1)是重要的促纤维化信号,可促进肌成纤维细胞活化,增加胶原蛋白及其他基质成分的合成。
资料显示,Th2和Th17的免疫环境相关信号、IL-6/STAT3、TL1A/DR3及IL-33/ST2通路也可能参与促纤维化网络。各通路并非彼此孤立,可能相互放大,并在不同模型和病程阶段发挥不同作用。
✔ 注意:某条通路在实验中有效,并不意味着它是所有患者的“总开关”。关键在于明确不同患者、病程阶段和组织环境中的主导信号,并评估阻断该信号的获益与风险。
组织变硬会反过来加剧纤维化
纤维化还有一个容易被忽略的特点:它可能形成自我强化的循环。细胞外基质沉积增多后,组织会变得更硬。细胞能够感知周围环境的硬度,并通过机械敏感信号改变自己的形态、黏附和增殖状态。处在较硬基质上的成纤维细胞,可能更容易维持活化状态,继续制造更多基质。
基质变硬增强局部黏附、增殖和促纤维化
研究指出,基质刚度变化可增强局部黏附、增殖和促纤维化信号,并帮助解释为什么某些狭窄即便在炎症活动减少后仍可能持续。TGF-β/Smad信号、机械敏感通路以及肠平滑肌和肠系膜脂肪之间的联系,都可能参与这一自我强化过程。
表观遗传改变:细胞记住“曾经损伤”
狭窄部位的肌成纤维细胞还可能发生更深层的分子重塑。所谓表观遗传,可以简单理解为细胞在不改变基因顺序的情况下,改变某些基因的开关状态。经历长期炎症和机械刺激后,细胞可能更容易打开促纤维化程序,也更难回到安静状态。
Smad7减少会使纤维化更容易持续
狭窄来源的肌成纤维细胞存在增强的TGF-β信号、较高的相关转录活动以及Smad7减少等变化。Smad7通常能够对TGF-β受体下游信号起到一定的抑制作用,因此其减少可能使促纤维化反应更容易持续。
纤维化并不只是“炎症还在不在”的问题,也可能是细胞状态已经被重新编程。未来如果能够让这些细胞重新获得停止修复、清除多余基质的能力,或许比单纯压制某一个炎症指标更能解决问题。
给患者的启发:不要把复杂病程全归咎于个人生活习惯
肠道纤维化是持续损伤、异常修复、细胞因子网络和组织硬化共同作用的结果。它与炎症相连,却不等同于炎症;需要同时关注免疫控制和组织重塑。
患者很容易产生自责:是不是自己吃错了?或者运动不够、作息不好,才让病情越来越复杂?
生活方式确实会影响整体健康和疾病管理,但肠道纤维化是多因素过程,涉及遗传易感、免疫调控、屏障状态和组织反应,不能简单归结为个人“做得不对”。
更合理的做法,是把可以控制的事情做好:按医嘱治疗,关注症状变化,接受必要的影像和内镜评估,保持适合自身耐受的营养摄入,并在出现梗阻风险信号时及时就医。
上一章讲了“肠壁为何变硬”,本章进一步探讨肠道微生物组参与其中的途径。目前较清晰的框架分为三层:第一,肠壁细胞直接感知微生物信号;第二,上皮细胞与免疫细胞接力,将局部刺激放大为炎症和修复信号;第三,微生物代谢物及组织外环境的变化,使这种反应持续存在。
肠道微生物群影响肠道成纤维细胞的机制
编辑
doi: 10.3389/fmed.2022.826240.
第一条路径:成纤维细胞直接识别微生物成分
人们通常认为,只有免疫细胞能识别微生物。实际上,肠道肌成纤维细胞等间充质细胞也表达多种模式识别受体,可识别脂多糖、鞭毛蛋白等微生物相关分子模式。LPS/TLR4、鞭毛蛋白/TLR5和PG-PS/NOD2/TLR2等信号轴,可能促进成纤维细胞活化及细胞外基质(ECM)重塑。
微生物失调介导的肠道屏障破坏和纤维化途径激活
编辑
Kim JH,et al.Intest Res.2026
LPS/TLR4信号促进促纤维化细胞因子释放
肠道肌成纤维细胞中的 LPS/TLR4 信号可激活 NF-κB,促进促纤维化因子释放和细胞外基质(ECM)生成;同时抑制 Smad7、TGF-β1 诱饵受体等负调控因子,间接放大 TGF-β 信号,从而加剧纤维化。
LPS–TLR4信号通过直接和间接机制促进纤维生成
编辑
Kim JH,et al.Intest Res.2026
此外,LPS 还可通过非 TGF-β 依赖机制直接诱导人类成纤维细胞表达胶原基因,显示其自身具有促纤维化作用。
鞭毛蛋白产生菌对促纤维化刺激有重要影响
鞭毛蛋白/TLR5信号是另一条独立于TGF-β的促纤维化通路。在人肠间质细胞(HIMFs)中,鞭毛蛋白通过TLR5/MyD88/PI3K/AKT/mTOR通路诱导ECM蛋白生成,并与TGF-β1协同作用。体内研究显示,α-SMA⁺细胞缺失MyD88可显著减轻肠道纤维化,凸显该通路的重要性。
鉴于肠道微生物组持续存在,且克罗恩病(CD)中鞭毛蛋白产生菌(如大肠杆菌和沙门氏菌)相对富集,鞭毛蛋白可能是持续存在且与疾病相关的促纤维化刺激。
✔ 保护屏障对阻断纤维化非常重要
只要微生物成分越过受损屏障,接触到组织深层,就有可能成为这些细胞接收到的外部信号。因此,保护屏障和减少异常暴露,可能是阻断纤维化的重要前置环节。
第二条路径:上皮细胞受刺激后把信号传给成纤维细胞
肠上皮细胞位于肠腔和身体组织之间,是微生物信号最早接触到的界面之一。它们受到刺激后,会释放细胞因子、趋化因子和氧化应激相关信号,影响周围的免疫细胞与间充质细胞。于是,微生物不必直接作用于成纤维细胞,也可能通过上皮细胞完成“间接转接”。
直接和间接微生物组驱动的纤维化通路
编辑
Kim JH,et al.Intest Res.2026
侵袭性病原菌可诱导上皮产生促纤维化信号
某些侵袭性微生物(如Shigella flexneri strain M90T)可诱导上皮细胞产生IL-6等促纤维化相关信号;炎症因子组合也可能上调上皮细胞中的TGF-β表达,随后使肌成纤维细胞增加胶原产生。
此外,活性氧可促进细胞外基质沉积,并通过TGF-β/Smad通路推动纤维化反应。
编辑
Kim JH,et al.Intest Res.2026
若上皮损伤持续存在,这些信号可能长期增强,导致炎症反应持续及组织修复异常。因此,修复上皮屏障与控制炎症并非相互替代,而是需要协同进行。
第三条路径:巨噬细胞把短暂刺激变成长时间的修复信号
巨噬细胞既参与损伤清除,也参与组织修复,并会随微环境改变功能状态。部分状态偏向防御,另一些则偏向修复与重塑;若修复反应持续过久,可能释放过量TGF-β等信号,促进成纤维细胞产生细胞外基质。
M2巨噬细胞有时会促进肠道纤维化
M1巨噬细胞通常是促炎的,由Th1细胞因子如TNF-α和IFN-γ诱导,而M2巨噬细胞则表现出抗炎和促纤维化特性,由Th2细胞因子IL-4和IL-13促进。
M2巨噬细胞主要通过释放TGF-β来促进纤维化。此外,M2巨噬细胞可以招募Th2淋巴细胞,进一步增强纤维生成信号。一项最新研究表明,凋亡的肠上皮细胞诱导M2巨噬细胞中Mer受体酪氨酸激酶(MerTK)/细胞外信号调节激酶(ERK)通路的激活,导致TGF-β1分泌、成纤维细胞激活和细胞外基质(ECM)产生,最终促进克罗恩病中的肠道纤维化。
注:不过,M2巨噬细胞在肠道纤维化中的具体作用仍待明确,不能将“M2”简单视为单一、固定的细胞类型。
微生物组还可能通过调节T细胞和抗原呈递细胞,将局部反应扩展至更广泛的免疫网络。例如,口腔来源细菌、牙周炎症与Th17反应的联系提示,不同部位的微生物群及免疫状态可能相互影响;抗原呈递细胞产生的TL1A则可能增强T细胞活化,并进一步作用于表达DR3的成纤维细胞。
编辑
Kim JH,et al.Intest Res.2026
粘附侵袭性大肠杆菌,值得重点关注
粘附侵袭性大肠杆菌(AIEC)在克罗恩病肠道纤维化中值得重点关注,主要基于以下几点:
①与狭窄型病变密切相关:AIEC常在克罗恩病狭窄病灶中检出,黏膜阳性率约为21%~62%,提示其可能参与纤维狭窄形成,而不仅是炎症的伴随现象。
②具有黏附、侵袭和持续定植能力: AIEC可通过FimH与上皮细胞CEACAM6结合,优先定植于回肠黏膜;同时能够破坏上皮屏障并侵入黏膜,增加肠壁暴露于细菌及其组分的机会。
③可直接触发促纤维化信号: AIEC来源的LPS和鞭毛蛋白可分别激活TLR4、TLR5等模式识别受体,诱导NF-κB、PI3K/AKT/mTOR及IL-33/ST2等通路,促进成纤维细胞活化、胶原蛋白和ECM生成。其中部分作用可独立于TGF-β,说明AIEC可能通过多条机制推动纤维化。
④连接上皮、免疫与间充质反应: AIEC鞭毛蛋白可增强上皮细胞IL-33/ST2信号;同时,AIEC还能刺激CX3CR1⁺抗原呈递细胞产生TL1A,进一步激活T细胞及DR3⁺成纤维细胞,形成持续的促纤维化网络。
⑤具有明确的精准干预价值: AIEC存在菌株异质性,适合开展个体化检测和治疗。阻断FimH介导的黏附、破坏生物膜、使用噬菌体或细菌素选择性清除AIEC,可能成为针对微生物—纤维化轴的治疗策略。但目前相关证据仍以机制研究和动物实验为主,临床有效性有待进一步验证。
AIEC菌株在肠道中的持续定植会促进肠道纤维化
编辑
doi: 10.3389/fmed.2022.826240.
微生物移位:肠道屏障失守及其向肠系膜的延伸
屏障受损时,活菌或微生物成分可由肠腔进入黏膜深层,甚至抵达肠系膜脂肪组织,这一过程称为微生物转位。由此,肠系膜脂肪组织可能持续暴露于微生物信号,成为肠道炎症和纤维化反应的参与者。
肠系膜脂肪组织可识别脂多糖(LPS)、鞭毛蛋白等病原体相关分子模式(PAMP),并通过TLR、NLR等先天免疫通路持续响应,进而影响巨噬细胞状态、脂肪组织重塑及平滑肌反应,可能构成“爬行脂肪”与肠道纤维化之间的联系。
因此,肠道纤维化是肠腔、肠壁、免疫细胞、脂肪组织及微生物代谢物相互作用的结果。干预可能需要同时减少异常微生物信号转位、维护肠道屏障,并阻断不同组织间的促炎和促纤维化放大效应。
很多人提到肠道疾病时,首先想到的是肠腔和肠黏膜。但在克罗恩病中,肠道周围的肠系膜脂肪组织也可能发生明显变化。它不再只是被动包裹肠管的“填充物”,而可能参与免疫反应、脂肪代谢和组织重塑。
临床上常用“爬行脂肪”描述包绕炎症肠段、沿肠管分布的肠系膜脂肪改变。
脂肪组织也是会“说话”的器官
脂肪细胞能够释放脂肪因子、细胞因子、脂肪酸和生长因子。正常情况下,这些信号参与能量储存和组织稳态。
肠系膜脂肪驱动炎症纤维化
当肠道长期炎症、微生物成分进入肠系膜后,脂肪组织的细胞组成和分泌模式可能改变。它们释放的介质会作用于邻近肠壁,影响免疫细胞、平滑肌细胞和成纤维细胞。
研究发现,微生物对肠系膜脂肪组织中的脂肪细胞和前脂肪细胞的刺激,可能有助于爬行脂肪形成以及克罗恩病肠道纤维化发展。病变脂肪组织可出现成熟脂肪细胞减少、前体细胞增多、促炎介质增加和成纤维细胞样细胞扩增等变化。
编辑
Kim JH,et al.Intest Res.2026
✔ 提示:
因此,当患者看到影像报告或手术记录中提到肠系膜改变时,不必把它理解成与肠道完全无关的“附带现象”。它可能反映的是肠壁和周围组织正在共同应对长期炎症。当然,具体意义仍需结合影像、内镜、病理和临床表现判断,不能仅凭一个描述就推断疾病一定会如何发展。
脂肪组织可能转向成纤维细胞样状态
研究显示,脂肪细胞具有一定可塑性。在微生物刺激、炎症及TGF-β等信号作用下,成熟脂肪细胞可能去分化为前体样细胞,并进一步转化为具有肌成纤维细胞特征的细胞,直接参与细胞外基质生成。DPP4相关前体细胞和TGF-β信号可能是这一过程的重要线索。
这意味着,脂肪组织中的纤维化细胞来源可能比过去认识的更复杂,不一定仅来自传统成纤维细胞。就像原本用于储存能量的仓库,在长期炎症刺激下,部分细胞可能转而参与组织“加固”;短期有助于维持结构,长期却可能使周围组织变得狭窄、僵硬。
“爬行脂肪”可能形成肠壁外的放大回路
肠系膜脂肪组织受到微生物信号和炎症介质激活后,可能释放更多促炎因子,增强M2样巨噬细胞、Th1/Th17反应及平滑肌改变。
M2a巨噬细胞极化促进成纤维细胞激活和爬行脂肪形成
编辑
Kim JH,et al.Intest Res.2026
肠腔、肠壁与脂肪组织相互促纤维化
肠壁炎症又会进一步损伤屏障,使更多微生物成分接近肠系膜,进而形成肠腔、肠壁与脂肪组织相互促进的恶性循环。
此外,炎症肠段平滑肌细胞释放的纤维连接蛋白等信号,可能促进前脂肪细胞迁移;当组织力学环境改变、Hippo等通路失衡时,脂肪细胞也更易转化为促纤维化细胞。
注:Hippo信号通路是一条在进化上高度保守的激酶信号转导通路。
这并不意味着“脂肪越多,纤维化越严重”,也不能用单纯减重替代克罗恩病治疗。关键在于组织微环境和细胞功能,而非体重本身。临床上更重要的是识别肠系膜脂肪释放的促病信号,并在保护正常组织功能的前提下,阻断其与肠壁之间的异常联系。
如果说微生物是肠道中的“居民”,那么微生物代谢物就是它们持续发出的化学信号。不同菌群利用膳食纤维、蛋白质、胆碱、磷脂酰胆碱和L-肉碱等原料后,会产生不同物质。这些代谢物不仅能作用于肠上皮细胞,还会影响巨噬细胞、T细胞、成纤维细胞和肌成纤维细胞;当肠屏障受损时,它们还可能进入肠壁深层组织,甚至进入全身循环。
因此,判断微生物组的意义,不能只看“有哪些菌”,还要关注“这些菌正在产生什么”?相同的菌群数量,在不同饮食、炎症和宿主代谢环境下,可能产生不同的功能结果。代谢物正是连接微生物与宿主的重要中间层。
肠腔狭窄、腹胀人群摄入纤维需注意
短链脂肪酸(SCFAs)主要包括乙酸盐、丙酸盐和丁酸盐,通常由肠道细菌发酵膳食纤维产生。其中,丁酸盐是结肠上皮细胞的重要能量来源,也是目前研究最充分的保护性代谢物之一。
与丁酸生成相关的菌群包括:
粪杆菌属,尤其是普拉梭菌(Faecalibacterium prausnitzii);
罗氏菌属(Roseburia);
真杆菌属(Eubacterium);
厌氧棒菌属(Anaerostipes);
粪球菌属(Coprococcus);
罕见小球菌属(Subdoligranulum);
厌氧丁酸菌属(Anaerobutyricum);
以及部分 Romboutsia、Anaerotruncus 和 Lachnospiraceae_NK4A136 group。
在克罗恩病相关的菌群失调和纤维化表型中,上述部分产短链脂肪酸菌群可能减少,尤其是普拉梭菌和部分毛螺菌科成员。它们的减少可能意味着肠道发酵膳食纤维、维持屏障和调节免疫的能力下降。
丁酸盐可能通过多条路径发挥保护作用
(1)丁酸盐可被肠上皮细胞利用:支持上皮细胞的能量代谢和修复。它还可能促进紧密连接蛋白和黏液屏障相关功能,帮助减少肠腔内微生物成分向固有层和肠系膜转移。
(2)丁酸盐能够抑制组蛋白去乙酰化酶:改变部分炎症和免疫相关基因的表达。通过这一机制,它可能促进调节性T细胞(Treg)分化,帮助恢复Th17/Treg之间的平衡,降低持续性免疫激活。
(3)短链脂肪酸可影响巨噬细胞的功能状态:部分研究提示,丁酸和相关产物有助于诱导具有抗炎或组织修复特征的巨噬细胞亚型,并促进IL-10等调节性因子产生。普拉梭菌及其代谢物还可能抑制Th17反应,从而减少IL-17对肌成纤维细胞的刺激。
(4)短链脂肪酸可能直接或间接影响成纤维细胞:它们一方面减少上皮损伤和炎症介质释放,另一方面可能降低TGF-β、IL-6等促纤维化信号的持续刺激,从而减少胶原蛋白和其他细胞外基质的异常沉积。
并非所有人都适合增加纤维摄入来补充短链脂肪酸
需要注意的是,这些保护作用主要来自细胞、动物和部分转化研究。即使短链脂肪酸具有潜在益处,也不代表患者都适合立即大量增加粗纤维或自行服用丁酸盐补充剂。
对于已经存在肠腔狭窄、腹胀、腹痛或梗阻风险的人群,过多不易消化的膳食纤维反而可能增加不适。饮食调整应结合疾病活动度、狭窄位置、营养状态和个人耐受性进行。
L-天冬氨酸:肠道狭窄的促纤维化候选物
与短链脂肪酸不同,L-天冬氨酸可能代表一类具有促纤维化作用的代谢信号。多组学研究发现,L-天冬氨酸水平与克罗恩病肠道狭窄或纤维化程度存在相关性,其来源可能涉及Saccharimonadales等微生物类群。
L-天冬氨酸能驱动肠壁纤维化
在体外实验中,L-天冬氨酸能够刺激人肠道肌成纤维细胞,诱导促纤维化基因表达;在动物模型中,它也可能加速细胞外基质沉积和肠壁纤维化。这提示,某些氨基酸代谢变化可能不仅是炎症的伴随现象,还可能直接参与成纤维细胞的功能改变。
其可能的过程包括:
目前,抑制L-天冬氨酸的合成、转运或细胞摄取被视为潜在研究方向。但“代谢物升高”“能够影响细胞”和“针对它治疗能够改善患者狭窄”是三个不同层次的问题,现有证据尚不足以支持患者自行通过饮食或补充剂降低L-天冬氨酸。
三甲胺:可能在不同组织中影响纤维化
三甲胺(TMA)和三甲胺-N-氧化物(TMAO)体现了“微生物—肝脏—宿主”共同决定代谢物效应的过程。
TMA与TMAO影响纤维化的多重因素
TMA和TMAO在不同组织纤维化研究中被认为可能通过氧化应激、TGF-β/Smad3、NLRP3炎症小体和PERK-mTOR等路径影响纤维化;材料同时指出,克罗恩病患者的TMA和TMAO变化可能存在复杂性,不能简单以“越高越坏”概括。最终效应取决于:
这表明,代谢物水平不仅取决于菌群,还受饮食原料、微生物加工、肝脏转化及宿主清除能力共同影响。因此,未来的代谢物干预需综合考虑饮食、菌群和宿主代谢,而不能仅依赖单一益生菌或保健品。
氧化应激:不利代谢环境如何反过来改变菌群
肠道炎症不仅改变菌群组成,也会改变肠道的氧化环境。炎症细胞和肠上皮细胞可产生过量活性氧(ROS),使肠腔和黏膜局部处于更强的氧化应激状态。
炎症氧化应激驱动产丁酸菌流失
这种环境对严格厌氧的产丁酸菌并不友好。例如,罗氏菌属和臭气杆菌属(Odoribacter)可能因氧化压力增加而减少;而菌群保护功能下降后,屏障修复能力进一步减弱,形成恶性循环。
研究还提示,P2X7受体可能是连接炎症、氧化应激和菌群变化的关键节点。P2X7受体被激活后,可促进NLRP3炎症小体活化并增加ROS生成,进一步推动IL-1β等炎症信号释放。炎症和氧化应激增强后,又可能加剧产丁酸菌的流失。
这一过程可以概括为:炎症增强 → P2X7受体激活 → NLRP3炎症小体和ROS增加 → 产丁酸菌减少 → 屏障功能下降 → 微生物及其产物转位增加 → 炎症和纤维化进一步加重。
相反,抑制P2X7/NLRP3轴、增强Nrf2等抗氧化防御通路,理论上可能减轻氧化环境,为有益厌氧菌恢复创造条件。但这目前仍主要属于机制研究和早期转化方向,并不意味着患者可以自行使用相关抑制剂或抗氧化补充剂。
色氨酸代谢物:吲哚、AHR与肠屏障修复
色氨酸是另一类重要的微生物代谢底物。部分肠道细菌能够将色氨酸转化为吲哚及其衍生物,包括吲哚-3-乙酸、吲哚-3-醛等。这些物质可以作用于芳香烃受体(AHR),影响上皮屏障和黏膜免疫。
色氨酸代谢物促进肠屏障保护
拟杆菌属的脆弱拟杆菌(Bacteroides thetaiotaomicron)被认为具有利用膳食色氨酸产生吲哚类物质的能力。吲哚激活AHR后,可能进一步影响Nrf2相关抗氧化通路,并促进:
当屏障得到改善时,脂多糖、鞭毛蛋白、细菌细胞壁片段以及其他促炎代谢物就不容易进入肠壁深层,从而间接减少成纤维细胞、巨噬细胞和T细胞受到的刺激。
注:目前,这一方向的研究重点不是单纯增加色氨酸摄入,而是探索“富含色氨酸的饮食+能够稳定产生有益吲哚代谢物的菌株”是否能够形成更可靠的屏障保护效果。对于克罗恩病患者,饮食和补充剂仍应根据疾病活动、肠道狭窄和营养状况个体化调整。
从“菌名检测”走向“功能检测”
传统菌群检测通常回答的是:某个菌属增加了,另一个菌属减少了。但对于肠道纤维化而言,更关键的问题可能是:
因此,未来更有价值的检测可能不是单纯列出“有哪些菌”,而是把宏基因组、代谢组、炎症指标、影像学和内镜结果结合起来,判断微生物组的实际功能。
一份报告即使显示某些“有益菌”减少,也不能直接预测患者一定会发生狭窄;同样,某种代谢物升高也不能单独作为纤维化诊断依据。只有当代谢物变化与症状、炎症活动、影像学狭窄和组织表现相互印证时,才可能真正帮助临床决策。
关于肠道微生物组与纤维化的许多认识,来自细胞实验、动物模型、患者组织和血清标志物研究。每一类证据都像一块拼图,但它们的强度和局限不同。理解证据如何一步步建立,可以帮助我们既看到研究前景,也不被“实验室有效”误导成“临床已经成熟”。
遗传线索: NOD2揭示宿主识别细菌的机制
资料显示,NOD2变异可能影响细菌成分识别,并与Paneth细胞功能障碍相关。Paneth细胞分泌抗菌肽、维持上皮屏障;其功能异常可能改变肠道与微生物之间的距离及信号强度。Nature于2021年发表的研究进一步支持了NOD2与克罗恩病肠道纤维化之间的机制联系。
这一发现表明,疾病风险不仅取决于“有哪些菌”,还取决于宿主如何识别和处理它们。相同的微生物环境在不同遗传背景下,可能引发程度不同的反应。
抗微生物抗体:提示病程复杂,但不能单独诊断纤维化
研究发现,CBir1、OmpC和I2等抗微生物抗体可能与克罗恩病的复杂病程、狭窄或穿透表型及更高的手术风险相关,部分血清学变化甚至可能早于临床诊断出现。但需要明确的是,它们无法可靠地区分肠道纤维化与其他复杂疾病表现。
因此,这些指标应被视为风险线索,而非命运预测。检测结果异常可提示医生加强随访、进一步进行影像学评估或综合判断,但不能替代症状、内镜、影像和病理结果。患者也不应仅因一次异常检测,就认定自己必然需要手术。
细胞实验结果需谨慎外推至临床
将微生物成分加入培养的上皮细胞或成纤维细胞后,研究者可观察到NF-κB、TGF-β、ROS等信号变化。这类实验只能说明细胞能否响应某种刺激,无法确认患者体内是否存在相同浓度的刺激、刺激是否来自同一种细菌,或阻断该刺激能否带来临床获益。
研究指出,部分上皮细胞实验使用了永生化细胞,仍需通过原代细胞和体内研究进一步验证。明确实验局限,是保证科学可靠性的重要组成部分。
临床现实:炎症控制仍是基础
资料指出,肠道纤维化常导致狭窄,临床意义重大,而有效的抗纤维化疗法仍是未满足的需求。微生物组机制为超越传统免疫抑制提供了新思路,但许多靶点仍停留在细胞、动物或早期转化研究阶段。
对患者来说,这意味着不能因为微生物组研究出现新进展,就自行停用现有治疗或用未经验证的方法替代规范管理。现阶段最稳妥的策略仍是由消化科团队判断炎症活动、狭窄程度、营养状况和并发症风险;微生物组相关检测和干预,只有在明确目的、了解局限并与整体治疗计划协调时,才可能发挥更大价值。
纤维化并不只发生在克罗恩病患者肠道。它本质上是组织反复受损后,修复过程没有按时“刹车”:成纤维细胞和肌成纤维细胞持续活化,胶原等细胞外基质(ECM)过度沉积,原本柔软、有弹性的组织逐渐变厚、变硬、失去正常结构。长期进展可导致器官功能下降,甚至器官衰竭。
除肠道外,纤维化可累及几乎所有器官和组织,最常见、危害最大的包括以下几类。
肺
✔ 常见纤维化形式或相关疾病:
• 特发性肺纤维化(IPF);
• 尘肺;
• 部分间质性肺病;
• 系统性硬化症相关间质性肺病。
✔ 主要危害:
肺泡间隔增厚、肺组织变硬,气体交换受阻;出现进行性气短、干咳、活动耐量下降,严重时呼吸衰竭。
肝脏
✔ 常见纤维化形式或相关疾病:
• 慢性乙/丙型肝炎;
• 酒精相关肝病;
• 代谢功能障碍相关脂肪性肝炎(MASH)等所致肝纤维化。
✔ 主要危害:
肝脏结构被瘢痕组织重塑,进展后可形成肝硬化、门静脉高压、腹水、消化道出血、肝功能衰竭,并增加肝细胞癌风险。
心脏
✔ 常见纤维化形式或相关疾病:
• 高血压性心肌纤维化;
• 心肌梗死后瘢痕;
• 糖尿病或心肌病相关纤维化。
✔ 主要危害:
心肌变硬、舒张和收缩功能受损,导致心力衰竭;同时可干扰电信号传导,增加心律失常和猝死风险。
肾脏
✔ 常见纤维化形式或相关疾病:
• 肾小球硬化;
• 肾小管间质纤维化。
✔ 主要危害:
肾单位逐渐丢失,滤过能力下降,可出现蛋白尿、水肿、电解质紊乱和尿毒症;晚期可能需透析或肾移植。
其他
编辑
不同器官纤维化,为什么危害都很大?
不同部位表现不同,但核心危害相似:
(1)组织变硬、弹性下降
肺无法充分扩张,心脏无法舒张,肠道难以蠕动,皮肤和关节难以活动。
(2)正常结构被“瘢痕”取代
例如肝小叶、肾单位、肺泡和心肌结构被破坏后,即使炎症减轻,功能也未必能完全恢复。
(3)形成自我强化循环
纤维化组织越硬,机械张力越大,越容易进一步激活TGF-β等促纤维化信号;因此纤维化有时可在炎症相对平稳后仍继续进展。
(4)增加终末期器官衰竭风险
肺纤维化可发展为呼吸衰竭,肝纤维化可发展为肝硬化与肝衰竭,肾纤维化可发展为终末期肾病,心肌纤维化则与心力衰竭和恶性心律失常密切相关。
与肠道微生物群有什么联系?
肠道微生物群的影响并不局限于肠道。肠屏障受损、菌群失衡或微生物代谢异常时,细菌成分及代谢物可能进入门静脉或全身循环,影响远端器官的免疫、炎症和代谢环境。
✔ 注意:菌群改变通常是风险线索和潜在参与因素,而不是单一病因。肠道菌群检测可作为个体化风险评估和动态观察的补充,但是不能单独诊断某个器官是否纤维化,也不能替代影像、内镜、血液检查或病理评估。
当我们知道微生物组可能参与纤维化,下一步自然会问:能不能把它调回来?目前研究主要沿着四个方向展开:恢复有益的代谢功能,精准补充或移植微生物,针对特定病原菌及其毒力,直接阻断微生物与宿主之间的促纤维化信号。
它们都很有潜力,但距离成为稳定、普适的临床方案,仍然需要回答安全性、个体差异、持续时间和真实结局等问题。
恢复功能:纤维、益生菌与合生元
✔ 短链脂肪酸产生菌有助于减轻纤维化
研究发现,通过益生菌、膳食纤维或合生元补充短链脂肪酸产生菌群,可能帮助改善屏障和免疫环境;F. prausnitzii、Anaerotruncus和Lachnospiraceae_NK4A136等产短链脂肪酸相关类群被列为有前景的研究对象。
短链脂肪酸(SCFA)产生菌,如F. prausnitzii,在克罗恩病(CD)相关的菌群失调和纤维化表型中常显著减少;其及其代谢物可上调抗纤维化细胞因子(IL-10、IL-12),同时抑制Th17反应。
注:除了SCFAs,某些长链脂肪酸,如二十碳四烯酸,已显示出通过降低ECM基因表达和CD患者特异性类器官模型中的组织硬度而具有靶向抗纤维化效果。
这里的重点并不是寻找或追求一个“最强菌种”,而是尽可能恢复一组相互关联的肠道功能。理想状态下,肠道生态系统应具备处理膳食纤维、产生具有保护作用的代谢物、支持屏障完整性以及维持免疫耐受的能力。也就是说,关注的不只是某个菌是否增加,还包括整体菌群能否共同发挥这些功能,以及这些功能是否与患者的实际状态相匹配。
✔ 调控P2X7R轴重塑抗纤维化菌群生态
近期证据表明,P2X7受体(P2X7R)是连接菌群失调与纤维化的关键分子开关。激活P2X7R可诱导NLRP3炎症小体并增加活性氧生成,形成不利于Roseburia、Odoribacter等严格厌氧产丁酸菌生存的氧化环境;抑制或缺失P2X7R则能减轻氧化应激,恢复这些有益菌的生态位。
其中,Roseburia intestinalis可增强上皮屏障,并抑制IL-17、肿瘤生长因子M等促纤维化介质的分泌;Odoribacter splanchnicus则抑制Th17反应、促进Treg分化,其细胞外囊泡还能通过抑制NLRP3炎症小体进一步减轻黏膜损伤。因此,调控P2X7R/NLRP3轴以重塑抗纤维化微生物组,可能成为下一代治疗策略。
✔ 益生菌干预应注重个体化与安全性
不同患者在饮食耐受性、基础菌群组成和症状表现方面存在较大差异。因此,未来更可能采用分层设计,根据个体情况选择相应的饮食、益生菌或合生元策略,而不是让所有患者都使用完全相同的配方。即使某种组合在研究中显示出潜力,也不能简单推断其对每个人都具有相同效果。
在日常管理中,可以将饮食记录与症状记录结合起来,持续观察哪些食物在病情稳定期更容易耐受,哪些食物在症状加重时可能需要暂时调整。这样的记录有助于了解个人模式,但不等同于自行制定严格的长期饮食方案。
任何明显改变饮食结构,或长期使用益生菌、合生元及其他补充剂的决定,都应同时考虑肠道狭窄、营养不良和药物相互作用等问题,并与整体治疗安排保持协调。
粪菌移植:从“整体搬运”走向更精准的微生物组干预
粪便微生物移植常被探索用于恢复健康微生物,但疗效并不一致,该领域正向针对特定纤维生成通路的精确干预转变。
✔ 特定菌株精准靶向肠道抗纤维化治疗
最近的研究表明,口服给药F. prausnitzii或其细胞外囊泡通过优先诱导抗纤维化的M2b巨噬细胞极化而非促纤维化的M2a表型来缓解肠道纤维化。此外,Bacteroides thetaiotaomicron与F.prausnitzii的双重组合在恢复Th17/Treg平衡和刺激抗纤维化IL-10分泌方面显示出优于单药治疗的疗效。
B.thetaiotaomicron的治疗潜力源于其将膳食色氨酸代谢为吲哚的能力,吲哚是芳香烃受体(AHR)的配体。激活AHR-Nrf2轴通过上调紧密连接和粘蛋白基因增强上皮屏障,同时保护肠上皮细胞免受氧化应激和TNF诱导的细胞凋亡。此外,B.thetaiotaomicron衍生的代谢物抑制病原菌的生长。
未来肠道纤维化治疗应由传统粪菌移植转向精准微生物组干预。由于菌群定植受患者原有菌群、饮食、药物、炎症及免疫状态影响,且供体材料存在未知成分、安全性和标准化等问题,FMT难以实现稳定、可控的疗效。
更具前景的策略是采用经过筛选、定量和质量控制的功能组合,例如将富含色氨酸的饮食与B.thetaiotaomicron或吲哚衍生物结合,以强化肠黏膜屏障、抑制促纤维化病原体移位,并实现更具针对性的抗纤维化治疗。
针对AIEC驱动纤维生成的精准干预
✔ 通过分析患者的AIEC菌株进行个性化干预
粘附侵袭性大肠杆菌(AIEC)与克罗恩病相关的狭窄有关,患者的粘膜阳性率约在21%至62%之间。这种显著的患者间变异性和菌株异质性突显了AIEC作为克罗恩病中潜在精准医疗靶点的可能性。
在未来,针对患者特定的粪便或组织AIEC菌株进行分析,以识别促纤维化特征,可以实现个性化干预,例如阻止上皮细胞粘附、采用噬菌体疗法选择性消除特定患者的AIEC,或抑制促纤维化代谢物的合成。
✔ 精准靶向AIEC的抗纤维化策略
针对AIEC及其促纤维化作用,已有多种治疗策略正在探索。环丙沙星、利福昔明等抗生素的临床疗效有限;相比之下,短链烷基硼酸和细菌素等新型药物在临床前研究中可有效抑制AIEC生长与致病性。
噬菌体可识别细菌表面受体、注入遗传物质并裂解靶菌,因此个体化噬菌体鸡尾酒疗法有望选择性清除促纤维化AIEC。研究显示,含7种噬菌体的鸡尾酒可在体外清除多种AIEC菌株,并减轻小鼠结肠炎炎症;FimH抑制剂Sibofimloc通过阻断AIEC上皮黏附也显示出良好效果,但仍需进一步验证。
总体而言,精准微生物组干预有望控制AIEC阳性CD患者的纤维化。其临床常规应用仍需实现目标菌株的快速准确鉴定,并证实清除该菌株可改善炎症、狭窄及患者生活质量。
直接针对宿主信号:从TGF-β、TL1A到氧化应激
除了改变微生物本身,还可以阻断微生物信号进入宿主后的关键节点。研究方向包括TGF-β相关通路、TL1A/DR3、IL-33/ST2、IL-6/STAT3、NLRP3炎症小体、P2X7受体和氧化应激防御等。理论上,阻断这些通路可以减少成纤维细胞活化或改变免疫细胞状态。
✔ 精准调控抗纤维化信号平衡
研究证据提到,抑制TL1A或IL-33/ST2等信号在实验模型中可以减少纤维化,激活Nrf2等抗氧化防御也被视为潜在策略;但不同通路广泛参与免疫和组织稳态,靶向时需要平衡抗纤维化获益与感染、免疫抑制或其他副作用风险。
这也是为什么抗纤维化治疗不能只追求“越强越好”。肠道需要一定的免疫防御,也需要一定的修复能力。真正理想的治疗,是把失控的信号压回合理范围,而不是让肠壁失去所有反应能力。
未来可能是组合策略,而不是单一方案
克罗恩病纤维化的形成涉及微生物、屏障、免疫、脂肪组织、机械环境和遗传背景。只改变其中一层,可能不足以扭转已经形成的循环。未来的方案或许会根据病程阶段组合使用:在炎症活动期加强疾病控制,在屏障受损时减少异常微生物暴露,在特定菌株明确时进行选择性靶向,在组织已经变硬时针对机械和基质重塑。
但组合治疗也意味着更复杂的风险管理。每增加一种干预,就需要回答它是否真的必要、是否会与现有药物相互影响、如何监测效果、何时停止。患者真正需要的不是“越多越先进”,而是有明确目标、有证据支持、能够被监测和调整的个体化方案。
克罗恩病肠道纤维化,并不是简单的“炎症留下的疤痕”,而更像一场长期失衡的修复:反复的炎症、受损的肠道屏障、被激活的免疫细胞、不断沉积的细胞外基质,以及肠系膜脂肪和肠道微生物群的变化,共同推动肠壁逐渐增厚、变硬,最终形成狭窄。
这种复杂性可能令患者感到疲惫:症状反复,检查结果未必完全反映实际感受,治疗也难以立即解决所有问题。但复杂不等于无能为力。研究正从“炎症如何发生”进一步转向“组织为何硬化”“哪些微生物信号参与其中”以及“如何在维持正常生态的基础上进行干预”。这些更精准的问题,将推动治疗更贴近患者需求。
肠道微生物群让我们看到,纤维化的发生不只取决于“有没有炎症”,还与肠道如何识别微生物信号、屏障是否完整、哪些代谢物增加或减少密切相关。菌群失调可能通过激活成纤维细胞、放大TGF-β等促纤维化信号、影响免疫反应和“爬行脂肪”,使修复过程难以适时停止;而短链脂肪酸等有益代谢物及其产生菌,可能有助于维持屏障和免疫平衡。
未来更合理的路径,是以规范控制炎症为基础,结合症状、实验室指标、影像与内镜评估、营养管理和生活方式调整,并在合适情况下纳入肠道菌群等微生态监测信息,开展个体化、动态化的综合干预。理解并利用微生物组,不是寻找“万能答案”,而是让我们有机会更早识别风险、更精准地保护肠道,并尽可能阻止肠壁在反复损伤与修复中逐渐变硬。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
相关阅读:
真实案例 | 克罗恩病患者肠道菌群检测
肠道菌群:用于区分克罗恩病与非克罗恩回肠炎
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
肠道菌群失调与炎症性肠病的关联
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症性肠病中宿主与微生物群的相互作用
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
什么是肠道屏障,影响因素,监测评估以及如何治疗干预
主要参考文献
Kim JH, Choi YJ, Yoo JH. Gut microbiome: a key driver and therapeutic target of intestinal fibrosis in Crohn’s disease. Intest Res. 2026 Aug 10.
Rieder F, Mukherjee PK, Massey WJ, Wang Y, Fiocchi C. Fibrosis in IBD: from pathogenesis to therapeutic targets. Gut. 2024 Apr 5;73(5):854-866.
Fousekis FS, Mpakogiannis K, Mastorogianni IN, Lianos GD, Christodoulou DK, Katsanos KH. Intestinal Fibrosis in Crohn’s Disease: Pathophysiology, Diagnosis, and New Therapeutic Targets. J Clin Med. 2025 Jun 8;14(12):4060.
Rieder F, Fiocchi C, Rogler G. Mechanisms, Management, and Treatment of Fibrosis in Patients With Inflammatory Bowel Diseases. Gastroenterology. 2017 Feb;152(2):340-350.e6.
Lin X, Wang Y, Liu Z, Lin S, Tan J, He J, Hu F, Wu X, Ghosh S, Chen M, Liu F, Mao R. Intestinal strictures in Crohn’s disease: a 2021 update. Ther Adv Gastroenterol. 2022 Jun 21;15:17562848221104951.
Watanabe D, Kamada N. Contribution of the Gut Microbiota to Intestinal Fibrosis in Crohn’s Disease. Front Med (Lausanne). 2022 Feb 7;9:826240.
Kim HY, Song MK, Gho YS, Kim HH, Choi BK. Extracellular vesicles derived from the periodontal pathogen Filifactor alocis induce systemic bone loss through Toll-like receptor 2. J Extracell Vesicles. 2021 Oct;10(12):e12157.
Yoo JH, Holubar S, Rieder F. Fibrostenotic strictures in Crohn’s disease. Intest Res. 2020 Oct;18(4):379-401.
谷禾健康
近来,Bilophila wadsworthia在谷禾肠道菌群检测实践以及多项肠道研究中检出率及其相对丰度持续升高,我们不禁思考,这是否与人群中一些相同的生活习惯有关,并且是否可能带来一些不良的健康影响呢?
沃氏嗜胆菌(Bilophila wadsworthia)是一种革兰氏阴性、专性厌氧的耐胆汁杆菌。它存在于人类胃肠道中,其重要特征是产硫化氢(H₂S):过量H₂S可干扰上皮线粒体代谢、破坏紧密连接和黏液层稳态,诱发或加重炎症,并引发腹胀、腹痛与排便模式改变。这一过程可能与代谢异常和肠黏膜炎症相互促进,与肠道炎症、炎症性肠病及肠易激综合征等相关。
从定植与扩增的诱因来看,饮食与宿主环境是关键驱动:西方饮食尤其是高饱和脂肪/乳脂饮食会提升牛磺酸结合胆汁酸(如 TCA)的比例与可及性,为B.wadsworthia提供充足“燃料”;动物性饮食占比高、纤维摄入不足则削弱产丁酸菌与丁酸水平,降低对B.wadsworthia的代谢性制衡;抗生素或质子泵抑制剂的使用、胆汁酸吸收与信号(FXR/TGR5)紊乱、肠腔更还原的环境以及黏膜屏障受损与轻度炎症,都会叠加提高其定植与增长的概率。
值得庆幸的是,针对B.wadsworthia过度增殖已有一些可操作的干预方向:
•调整饮食脂肪“质与量”,减少饱和脂肪/乳脂与牛磺酸摄入(例如海鲜尤其贝类,动物内脏等);
•增加可发酵膳食纤维(如菊粉、抗性淀粉)以提升丁酸生态、降低肠腔 pH 并重建竞争格局;
•审慎使用可能影响胆汁酸与菌群的药物;
•通过生活方式与微生态支持手段降低H2S负荷、改善屏障功能。
本文将从基础特征、致病机制到饮食与干预策略,系统解析Bilophila wadsworthia与人体健康的关联。
沃氏嗜胆菌(Bilophila wadsworthia)是一种革兰氏阴性、专性厌氧的耐胆汁杆菌,属于变形菌门->脱硫弧菌目->脱硫弧菌科->嗜胆菌属,于1988年从阑尾炎患者的腹膜液和组织标本中分离出来后首次被描述。
它存在于人类胃肠道中,被认为是共生肠道菌群的一部分,但越来越被认为是腹腔内、泌尿生殖系统和软组织感染中潜在的机会性病原体。并且其胆汁耐受性和将硫化合物进行还原,从而产生硫化氢(H₂S)的能力增强了其致病性,当其丰度过高时,可能与与炎症性肠病、肠易激综合征和结直肠癌等疾病有关。
1
基础信息
命名由来:Bilophila源自拉丁文 “bilis”(胆汁)和“philus”(喜爱),意为“喜胆汁的微生物”。wadsworthia是为了纪念美国Wadsworth厌氧菌实验室。
模式菌株:WAL 7959;其他菌株编号如 ATCC 49260、CCUG 32349、DSM 11045 (RZATAU)。
DNA G+C 含量:约 59.2 mol%。
形态:小到中等大小的杆状菌,通常为 0.7–1.1 μm × 1.0–2.0 μm。
染色特性:革兰氏阴性,但染色可能不典型。
编辑
Gan F,et al.BMC Infect Dis.2025
来自患者血培养的 Bilophila wadsworthia 革兰氏染色。细菌被染色为革兰氏阴性杆菌,如深色箭头所示。
运动性:非运动性
芽孢:不形成芽孢
细胞壁:典型的革兰氏阴性菌结构,含内毒素,但其活性低于大肠杆菌等常见致病革兰阴性菌。
超微结构:通过电镜可见典型的内膜和外膜结构,无鞭毛结构。
2
生长条件与代谢能力
氧气需求:严格厌氧
最适生长温度:35–37°C(人体体温范围)
菌落形态(在BBE琼脂上):初期为小、透明至半透明、中心黑色的菌落;培养 3 天后,可变为黑色、不透明、低凸或脐状,常伴硫化氢(H₂S)沉淀(黑色 FeS)。
呼吸类型:严格厌氧呼吸
主要代谢途径:能利用肽类作为碳源和能源,产生 乙酸为主要终产物,以及少量琥珀酸。
小鼠和人类实验表明以动物脂肪和乳源性饱和脂肪为基础的饮食可以增加Bilophila wadsworthia。
电子供体/受体:能以甲酸作为电子供体,进行硫还原反应,将含硫氨基酸或牛磺酸还原为硫化氢(H₂S)和乙酸;
不还原硫酸盐,但能还原亚硫酸盐、硫代硫酸盐,并产生H₂S。
人类肠道细菌B.wadsworthia的代谢
doi: 10.1073/pnas.1815661116.
★ 关键生化特征:
•异硫醚裂解酶:介导肠道中 H₂S 的生成,属于甘氨酰自由基酶家族;
•具有很强的过氧化氢酶活性:尤其对15%H₂O₂;
•约 75–90% 菌株产脲酶;
•不发酵糖;凝胶酶阴性、淀粉与七叶苷水解阴性、卵磷脂酶/脂肪酶阴性、吲哚阴性。
•对20%胆汁耐受并被刺激;对香豆素类耐受。
3
耐药性与敏感性
✔普遍敏感的抗生素:
甲硝唑:几乎所有菌株均敏感;
✔可能耐药的抗生素:
•克林霉素
•亚胺培南
•氨苄西林/舒巴坦
•头孢西丁(cefoxitin,32 μg/mL)
注:超过85%的菌株产生 β-内酰胺酶,导致对青霉素类和头孢菌素类天然抵抗。
4
人群中的存在情况
✔主要分离来源:
•人类及动物(如狗)的消化道(胃肠道)、泌尿生殖道和口腔(尤其是牙周袋);
•感染性病灶:如脓肿、化脓性感染;
✔在人体中的分布:
•一般在健康人群粪便中占比较低,但是如果一段时间高饱和脂肪/乳脂或大量牛磺酸摄入(例如大量海鲜尤其贝类,动物内脏等)其丰度会增加;
•但在某些病理状态下(特别是穿孔性或坏疽性阑尾炎)是第三常见的厌氧菌分离株;
•可从血液、脑脓肿、肝脓肿、肺脓肿、盆腔感染、口腔感染、皮肤软组织感染等多种临床标本中分离出,通常为混合感染的一部分。
✔与饮食的关系
•高动物性脂肪/蛋白饮食(富含饱和脂肪与胆汁酸)可显著促进肠道中 B.wadsworthia的增殖;
该菌被认为是 “西方饮食相关菌”,与炎症性肠病等现代慢性疾病发展存在潜在关联。
5
在健康与疾病中的作用
✔健康状态下的角色
•在健康人群中通常为非优势菌,数量比较低甚至检测不到;
•可能作为肠道正常厌氧菌群的一部分,参与含硫氨基酸代谢与胆汁酸相关底物的降解;
•如果丰度高,则产生的过量 H₂S(硫化氢)可能影响肠道上皮细胞功能与黏膜稳态。
✔在疾病中的潜在作用
(1)感染性疾病
•腹腔感染:阑尾炎(尤以坏疽/穿孔型)、腹膜炎、肝脓肿、脾脓肿;
•软组织与皮肤:Fournier 坏疽(坏死性筋膜炎)、伤口感染;
•口腔与头颈部:牙周感染、颌面部脓肿、中耳炎;
•妇科:盆腔炎、Bartholin 囊肿感染;
•血流感染:菌血症;
•骨与关节:骨髓炎;
•肺部:肺脓肿、脓胸。
(2)与炎症及免疫反应的关联
•产生大量 H₂S:低浓度为信号分子,高浓度具细胞毒性与促炎作用。
•可抑制线粒体功能、破坏 DNA、诱导氧化应激并损伤肠上皮屏障。
•可能参与炎症性肠病(IBD)、溃疡性结肠炎和克罗恩病的发病机制。
•内毒素(LPS)虽活性较弱,仍可激活宿主免疫并促进局部炎症。
•与肠道菌群失调密切相关,尤其在高脂高胆汁饮食、肥胖和代谢综合征背景下易增殖。
(3)与胆汁酸及饮食的交互作用
•该菌依赖胆汁环境生长,是典型的胆汁耐受与利用菌;
牛磺酸代谢是其重要特征,与胆盐循环和肠道硫代谢密切相关;
高动物脂肪摄入 → 刺激胆汁分泌 → 增加胆盐水解 → 提供牛磺酸等底物 → 促进Bilophila wadsworthia增殖;这种机制可能是现代饮食相关慢性炎症疾病的潜在“菌-食-炎”轴之一。
6
与人体及其他菌群的相互作用
✔与宿主互作:
•通过代谢胆汁酸相关物质(如牛磺酸)、产生 H₂S,影响肠道生理与免疫平衡;
•可能通过破坏肠道屏障,促进内毒素入血与系统性炎症;
✔与其他微生物互作:
•常与其他厌氧菌(如 Bacteroides, Clostridium, Fusobacterium)共生,形成复杂的感染微生物群落;
•在肠道中可能与益生菌(如产丁酸菌)竞争营养或生态位,加重菌群失调;
•与硫酸盐还原菌(如 Desulfovibrio)有代谢相似性,但不完全相同,可能在硫循环中占据不同生态位。
增强:
•Bacteroidales
•Bacteroides
•Odoribacter
•Peptococcaceae
抑制:
•Bifidobacterium
•Coriobacteriales
•Adlercreutzia
•Collinsella
•Porphyromonas
•Prevotella
•Clostridium
•Clostridiales incertae sedis
•Clostridiales Family XIII. Incertae Sedis
•Blautia
•Coprococcus
•Dorea
•Lachnospiraceae
•Ruminococcaceae
•Ruminococcus
•Dialister
•Campylobacteraceae
•Erysipelotrichaceae
沃氏嗜胆菌(Bilophila wadsworthia)属于正常肠道菌群的可检出成员;但在特定饮食/环境下可由“共栖”转为“条件致病菌”。包括以下几种情况:
①感染性疾病
Bilophila wadsworthia在腹腔感染中(如穿孔/坏疽性阑尾炎、腹腔脓肿与肝脓肿)被检出,通常与其他厌氧或兼性致病菌共同存在,呈现典型的混合感染特征;此外,虽不常见,但亦有零星菌血症病例被报道。
②促进炎症
研究从一名患者粪便中分离Bilophila wadsworthia, 并经连续7天口服灌胃于SPF小鼠,观察到显著的体重与多部位脂肪量下降、肝脾肿大,以及血清炎症标志物SAA与IL-6升高;且16S rRNA测序显示整体肠道微生物群α/β多样性与OTU组成未发生显著改变。
上述结果表明,在不显著扰动整体肠道微生态的情况下,高负荷Bilophila wadsworthia可诱发系统性低度炎症,具有潜在致病性,并可能参与肥胖、糖尿病等慢性炎症相关代谢疾病的发生与进展。
③增加代谢障碍风险
该研究揭示高脂饮食(HFD)与Bilophila wadsworthia协同,加剧宿主的代谢失衡:其通过提升肠黏膜与全身炎症、破坏肠屏障、扰乱胆汁酸与短链脂肪酸(特别是丁酸盐)代谢,最终导致更差的血糖稳态与肝脂肪变性;多组学(宿主转录组与微生物群转录组)分析指向脂多糖生物合成上调与丁酸代谢通路下调是关键机制。
B.wadsworthia与高脂饮食协同引发代谢障碍
doi: 10.1038/s41467-018-05249-7.
④还可能影响认知功能
还有动物研究发现,沃氏嗜胆菌(Bilophila wadsworthia)会损害海马体,导致认知能力下降。
▸ B.wadsworthia过高意味着什么?
那么,当Bilophila wadsworthia水平升高时可能意味着几件重要的事情,也可能指向一系列值得关注的变化或信号:
1.潜在的肠道菌群失调:高于正常水平的B.wadsworthia可能表明肠道微生物组失衡。
2.炎症风险增加:B.wadsworthia会产生硫化氢,过量会导致肠道炎症,并与炎症性肠病和肠易激综合征等疾病有关。
3.饮食不均衡:水平升高可能与饱和脂肪含量高的饮食和富含牛磺酸的食物(如肉类和奶制品)有关,因为这些会刺激B.wadsworthia的生长。
4.代谢问题:研究表明,较高水平的B.wadsworthia已被证明会加剧代谢功能障碍,特别是与高脂肪饮食相结合时。这可能导致炎症增加、肠道屏障功能障碍和血糖调节问题。
5.潜在的健康风险:虽然健康个体中存在B.wadsworthia,但过度生长与各种健康问题有关,包括与结直肠癌的潜在联系。
6.胆汁酸代谢:由于B.wadsworthia在富含胆汁的环境中茁壮成长,因此水平升高可能表明胆汁酸代谢或产生发生变化。
值得注意的是,虽然水平升高可能会引起关注,但B.wadsworthia本身的存在并不一定有害。它是许多人正常肠道菌群的一部分。关键是平衡——太多可能会导致问题。
▸ B.wadsworthia产生硫化氢的机制及影响
✔产生机制
人肠道中的Bilophila wadsworthia厌氧利用牛磺酸产生硫化氢(H2S)的完整脱磺代谢途径,并鉴定出关键的甘氨酰自由基酶“异乙酸磺酸亚硫酸裂解酶”(IslA):
该途径先由已知的牛磺酸:丙酮酸氨基转移酶(Tpa)将牛磺酸转为磺乙醛,再由新发现的 NADH 依赖性还原酶(SarD)还原为异乙酸磺酸(isethionate),随后 IslA 催化新型自由基介导的 C–S 键断裂,生成亚硫酸盐与乙醛;乙醛被 AdhE 氧化为乙酰辅酶 A,而亚硫酸盐经异化亚硫酸盐还原酶(Dsr)还原为 H2S。
✔对人体健康的潜在影响
H2S在生理低剂量具信号分子功能,但在局部高浓度时可抑制线粒体细胞色素氧化酶、损伤上皮细胞,导致:
•肠黏膜屏障受损,肠通透性上升(“漏肠”);
•黏膜免疫激活与促炎介质上调;
•系统性低度炎症风险增加。
并且在高脂饮食背景下,B.wadsworthia扩增与H2S负荷上升与代谢失衡相关,可能导致:
•空腹血糖上升/胰岛素抵抗;
•肝脂肪堆积与胆汁酸谱失衡;
•微生物短链脂肪酸(尤其丁酸)减少,进一步削弱屏障修复与免疫稳态。
▸ B.wadsworthia对炎症的影响
研究发现,B.wadsworthia丰度过高具有促炎倾向:与黏膜TH1型免疫应答、全身低度炎症和结肠炎风险上升有关,尤其在遗传易感或屏障受损宿主中更显著。具体机制如下:
✔系统性炎症
短期高负荷B.wadsworthia会导致:体重和脂肪量显著下降、肝脾肿大、血清SAA与IL‑6升高;但结肠形态与局部炎症基因(Il6、Tnfα、Tlr4)未见显著变化,提示以全身性低度炎症为主,而非急性局部结肠炎。
✔结肠炎与TH1免疫
在IL‑10−/−或DSS处理等易感条件下,富乳脂饮食(MF)特异性促发B.wadsworthia“爆发式”增殖,并诱导TH1偏向(IFNγ↑、IL‑12p40↑),显著提高结肠炎发生率与严重度。
机制关键在于MF促进肝胆汁酸牛磺酸结合,为B.wadsworthia提供含硫电子受体与优势生态位。
▸ B.wadsworthia与消化系统的关联
✔炎症性肠病与结肠炎
在屏障受损情况下,B.wadsworthia扩增与结肠炎显著相关;人群研究亦提示产硫菌与炎症性肠病联系增强。
✔腹胀与功能性症状
过量H2S会抑制肠上皮细胞的能量代谢并破坏黏膜完整性,继而使屏障功能下降、通透性升高,诱发与气体积聚导致的腹胀和炎症相关的不适感与敏感症状;在动物研究中,Bilophila wadsworthia的扩增与全身性低度炎症及消化功能紊乱相伴出现,提示其代谢负荷上升与宿主应答有关。临床观察亦显示,B.wadsworthia常在腹腔感染与阑尾炎标本中被检出,其数量增加时产生的H2S负担随之上升,进一步加剧局部刺激与屏障受损。
总体而言,当B.wadsworthia过度增殖时,可能通过H2S增加而诱发一系列胃肠症状,包括腹胀、腹痛以及排便习惯的异常,加重患者的消化不适与炎症相关表现。
✔结直肠癌风险信号
部分研究提示,结直肠癌患者的结肠菌群中B.wadsworthia的相对丰度约为健康对照的近两倍,这一差异在多项独立样本中均有报告,具有一定一致性与指向性;同时,H2S所表现出的遗传毒性与对上皮屏障的损伤特征,为建立从菌群变化到黏膜损害再到肿瘤风险上升的致病链条提供了合理假说依据,但当前证据仍以相关性为主,尚缺乏明确的因果性验证与机制层面的决定性证明。
✔代谢并发症“肠–肝–代谢轴”
在高脂饮食背景下,B.wadsworthia的扩增与多种代谢异常呈相关,包括空腹血糖升高、胰岛素抵抗的加重、肝脏脂肪变性形成、胆汁酸组成与比例的紊乱,以及短链脂肪酸尤其是丁酸水平的下降等;并且,即使在采取抑炎措施的条件下,仍可观察到部分不良代谢表型持续存在,这一现象提示除炎症通路之外还存在直接的代谢层面影响,可能独立驱动或维持这些代谢失衡的发生与发展。
那么究竟有哪些因素会导致导致Bilophila wadsworthia丰度过高呢?接下来我们将从饮食、微生态以及宿主相关多方面入手,系统梳理并逐一说明,一起来详细了解其中的关键影响因素。
1
饮食与营养相关因素
✔高脂/高饱和脂饮食(尤其海鲜贝类,乳脂,动物内脏)
高饱和脂肪促进肝肠轴中牛磺酸结合胆汁酸(如 TCA)增加,提供Bilophila wadsworthia所需的含硫电子受体与生态位优势。富乳脂饮食可引发B.wadsworthia“爆发式”扩增,并与黏膜 TH1 型应答、炎症表型与代谢异常相关。
✔动物性饮食与低纤维饮食
动物性膳食可在短期内提高胆汁酸排入与肠腔 pH、氧化还原条件的改变,从而利于耐胆汁、硫代代谢菌扩张。
低发酵性纤维摄入减少丁酸等短链脂肪酸(SCFAs)与抑菌代谢物,使B.wadsworthia生态位竞争压力下降。
✔牛磺酸相关底物增加
加工肉类、能量饮料及部分补剂中牛磺酸摄入升高,或间接增加牛磺酸可利用性。
胆汁酸的牛磺酸结合比例上升(受饮食与宿主代谢影响)直接增加B.wadsworthia可利用的硫源。
2
胆汁酸代谢与宿主生理
✔胆汁酸流量与结肠通达性增加
胆汁酸吸收障碍、肠道转运异常或小肠结肠反流样改变,增加结肠胆汁酸负荷,利于耐胆汁菌群(含B.wadsworthia)。
✔胆汁酸信号通路扰动(FXR/TGR5)
FXR 被抑或信号异常时,宿主对胆汁酸合成/回收的精细调控受损,可能提升肠腔可发酵硫源。
✔肝胆疾病或代谢综合征
相关病理状态常伴胆汁酸谱紊乱(结合/去结合比例、次级胆汁酸↑),为B.wadsworthia提供适宜生态位。
3
免疫状态不佳
✔黏膜屏障受损或免疫调节缺陷
如 IL‑10 信号不足、屏障破坏等条件下,B.wadsworthia更易扩增并触发炎症正反馈。
✔炎症微环境的双向作用
低度炎症可改变黏液层、胆汁酸转运与上皮代谢,反过来提高B.wadsworthia的定植与利用底物效率。
✔胃肠动力与分泌改变
蠕动减缓或分泌节律异常,延长底物滞留并改变胆汁酸在远端肠段的浓度与形态,有利于B.wadsworthia聚集。
4
药物与医疗相关因素
✔质子泵抑制剂(PPI)与抗生素暴露
质子泵抑制剂(PPI)可改变胃酸屏障与肠道菌群,增加胆汁酸通达与上游底物流向结肠的机会;广谱抗生素则削弱竞争菌群,为B.wadsworthia腾挪生态位。
✔胆汁酸代谢相关药物或补充剂
某些降脂药、胆汁酸结合树脂或促进胆汁分泌药物,可能通过改变胆汁酸谱与流量间接影响B.wadsworthia(取决于具体药物对结合比例与肠腔到达量的影响)。
✔营养补充剂中的牛磺酸摄入
高剂量牛磺酸补充,理论上可提高可利用硫源,尤其在高脂饮食并存时,叠加风险更大。
当Bilophila wadsworthia丰度过高时有哪些具体且可行的干预措施呢?
▸ 饮食结构干预:减少“供料”,恢复生态位竞争
✔偏向植物性、高纤维的膳食模式
目标:提升可发酵纤维与短链脂肪酸(特别是丁酸)生态,抑制Bilophila wadsworthia。
做法:每日纳入全谷物、豆类、根茎类与绿叶蔬菜;逐步增加,以避免胀气不适。
✔限制高饱和脂肪和动物肉类及富含牛磺酸饮食
依据:高脂饮食与过量乳脂可促胆汁分泌与牛磺酸结合胆汁酸上升,为B.wadsworthia提供底物。
做法:适度下调饱和脂来源(黄油、奶油、全脂乳),以橄榄油、坚果、亚麻籽,芝麻中的不饱和脂肪为主,控制总脂能比至中等水平。
✔避免不必要的牛磺酸补充
依据:B.wadsworthia可利用牛磺酸作为电子受体生成 H2S。
做法:避免能量饮料与高剂量牛磺酸补剂的额外输入。
▸ 益生元与益生菌:“以友抑敌”,重塑代谢
✔益生元(优先证据:菊粉/菊粉型果聚糖)
人体随机双盲交叉试验证据:每日约12g菊粉可显著提升Bifidobacterium、Anaerostipes(产丁酸属),并显著下降Bilophila。
使用建议:从低剂量起步(如3–5g/d),1–2 周递增至目标剂量,监测胀气耐受。
✔益生菌:抑制B.wadsworthia过度扩张
鼠李糖乳杆菌CNCM I-3690 (Lr) 的每日口服管饲导致粪便B.wadsworthia丰度显著降低。同样,鼠李糖乳杆菌CNCM I-3690 能够进一步减少盲肠和小肠中的B.wadsworthia扩张。除了通过阻止其在体内扩张来抑制与B.wadsworthia相关的代谢功能障碍外,它还通过其调节胰岛素水平的固有能力来改善代谢功能。
临床可及替代策略:选择有助于提升双歧或产丁酸生态的复合益生菌;关注个人耐受与症状反馈。
▸ 胆汁酸相关策略:减少远端结肠“胆汁酸泛滥”
饮食先行:优先通过“脂肪质量与剂量管理+高纤”降低胆汁酸通达与牛磺酸结合比例的上行驱动。
✔避免促胆汁酸通达远端结肠的行为与药理因素
例如不必要的长期高剂量脂肪冲击式饮食;与医师评估某些药物对胆汁酸谱与流量的影响。
注:个别药物(如胆汁酸结合树脂)对肠道胆汁酸生态影响复杂,应用需由医生根据适应症与并发症风险综合判断。
▸ 微生态与生活管理
✔提升产丁酸菌生态
路径:可发酵纤维(菊粉、抗性淀粉、部分半乳寡糖)+ 多酚类食物(莓果、绿茶、可可等)+ 充足睡眠与规律运动。
目标:通过丁酸盐以强化上皮代谢与屏障功能,降低B.wadsworthia优势。
✔减少含硫发酵压力与蛋白质过量腐败
在干预期控制过量红肉/加工肉类,避免过量富含含硫氨基酸的“单一高蛋白”模式与吃法。
✔缓解低度炎症与氧化应激
富含抗氧化的全食物饮食、压力管理、保证睡眠;必要时与医生讨论是否需要针对性抗炎策略(如有基础疾病)。
主要参考文献
Sayavedra L, Yasir M, Goldson A, Brion A, Le Gall G, Moreno-Gonzalez M, Altera A, Paxhia MD, Warren M, Savva GM, Turner AK, Beraza N, Narbad A. Bacterial microcompartments and energy metabolism drive gut colonization by Bilophila wadsworthia. Nat Commun. 2025 May 30;16(1):5049.
Natividad JM, Lamas B, Pham HP, Michel ML, Rainteau D, Bridonneau C, da Costa G, van Hylckama Vlieg J, Sovran B, Chamignon C, Planchais J, Richard ML, Langella P, Veiga P, Sokol H. Bilophila wadsworthia aggravates high fat diet induced metabolic dysfunctions in mice. Nat Commun. 2018 Jul 18;9(1):2802.
Peck SC, Denger K, Burrichter A, Irwin SM, Balskus EP, Schleheck D. A glycyl radical enzyme enables hydrogen sulfide production by the human intestinal bacterium Bilophila wadsworthia. Proc Natl Acad Sci U S A. 2019 Feb 19;116(8):3171-3176.
Han S, Krothapalli TR, Zafar SJ, Gautham S. A rare case of Bilophila wadsworthia bacteremia presenting as multiple hepatic abscesses: A case report and literature review. IDCases. 2025 Aug 11;41:e02342.
Feng Z, Long W, Hao B, Ding D, Ma X, Zhao L, Pang X. A human stool-derived Bilophila wadsworthia strain caused systemic inflammation in specific-pathogen-free mice. Gut Pathog. 2017 Oct 26;9:59.
Devkota S, Wang Y, Musch MW, Leone V, Fehlner-Peach H, Nadimpalli A, Antonopoulos DA, Jabri B, Chang EB. Dietary-fat-induced taurocholic acid promotes pathobiont expansion and colitis in Il10-/- mice. Nature. 2012 Jul 5;487(7405):104-8.
Baron EJ. Bilophila wadsworthia: a unique Gram-negative anaerobic rod. Anaerobe. 1997 Apr-Jun;3(2-3):83-6.
Schumacher UK, Eiring P, Häcker FM. Incidence of Bilophila wadsworthia in appendiceal, peritoneal and fecal samples from children. Clin Microbiol Infect. 1997 Feb;3(1):134-136.
Summanen P, Wexler HM, Finegold SM. Antimicrobial susceptibility testing of Bilophila wadsworthia by using triphenyltetrazolium chloride to facilitate endpoint determination. Antimicrob Agents Chemother. 1992 Aug;36(8):1658-64.
谷禾健康
随着现代医学的不断进步,人类对于肠道微生态的研究正逐渐深入,粪菌移植(FMT)作为一种新兴的、生物学意义深远的治疗手段,在临床实践中展现出了革命性潜力。FMT广泛用于治疗艰难梭菌感染等复杂疾病,并逐渐延伸至免疫功能调节、代谢紊乱等领域,尤其是在儿童人群中的应用引发了广泛关注。
然而,在这项技术日益普及的同时,其在特殊人群中的安全性问题始终是临床医生和产业从业者关注的焦点。大多数关于FMT安全性的研究主要集中在成人人群中,而对儿科人群的了解较少,目前所有儿科FMT数据均来自小型病例系列和病例报告。
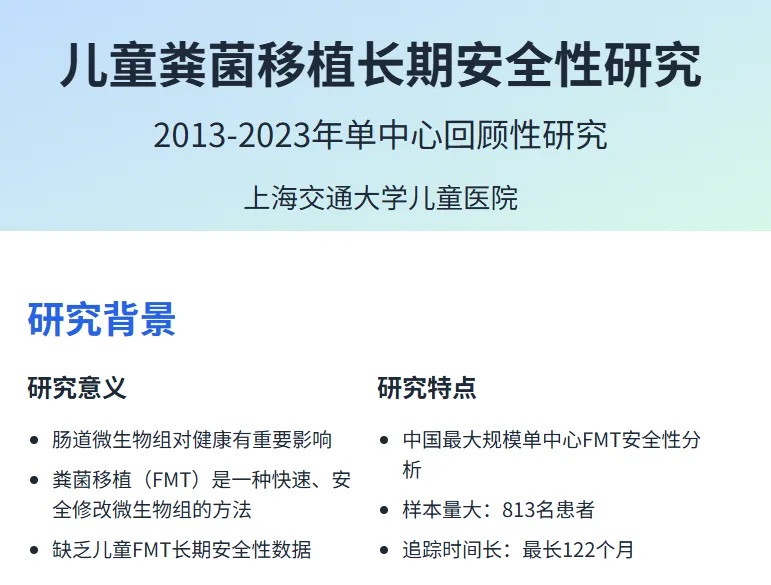
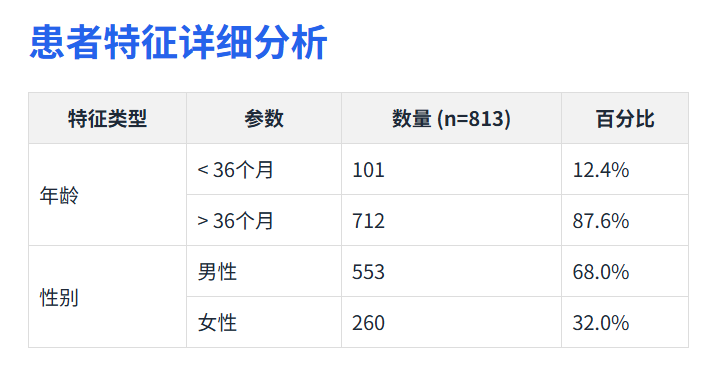
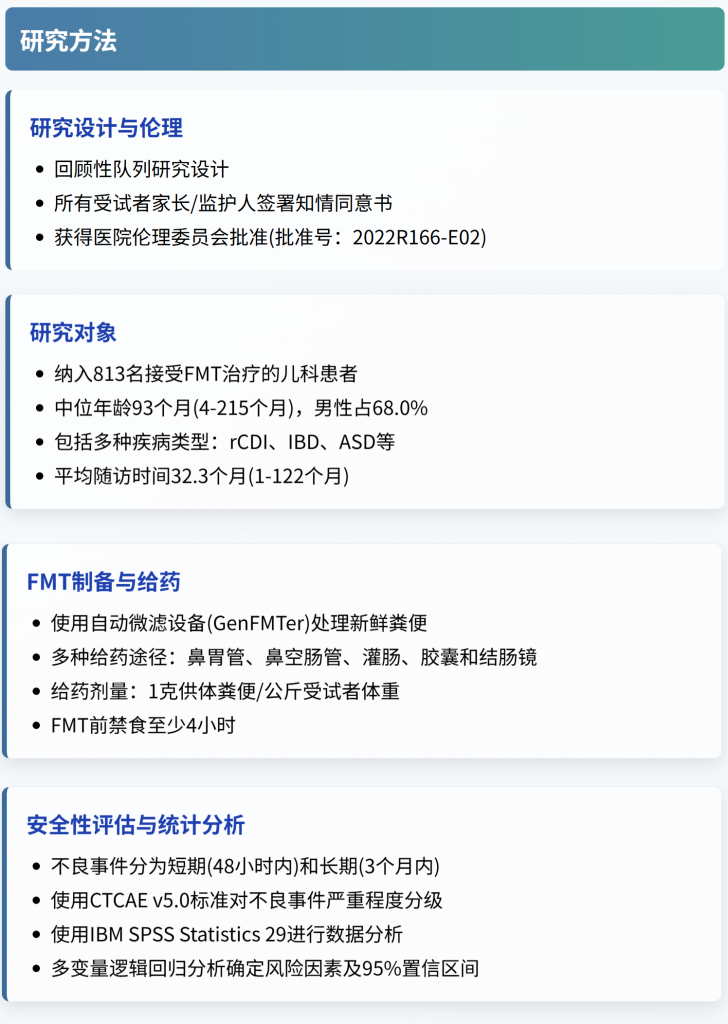
近日,一项来自上海儿童医院的大规模单中心回顾性研究,揭示了FMT在儿童人群中的长期安全性数据。这项跨越十年(2013-2023年)、涵盖813名儿童患者的研究,不仅是目前样本量最大的儿科FMT安全性评估,更是首次系统性地呈现了中国儿童接受FMT后的长期随访结果。
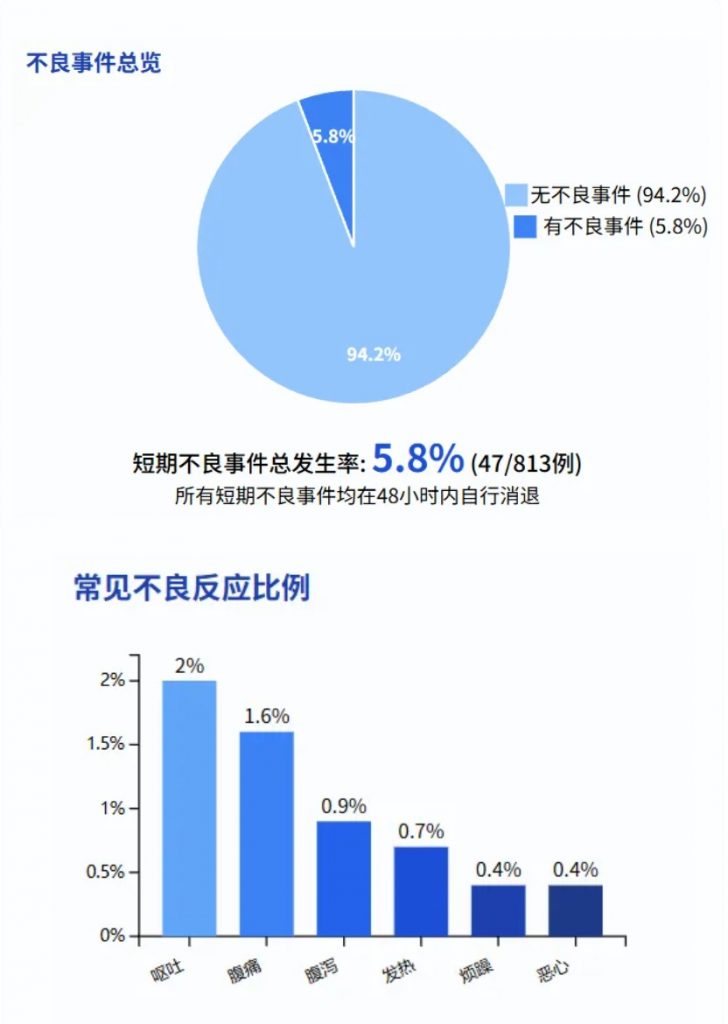
研究发现,FMT在儿科人群中总体表现安全,短期不良事件(AE)发生率仅为5.8%,且大多为轻微自限性症状;在长达122个月的随访期内未观察到长期不良事件。
这些珍贵的临床数据将为技术优化、产品研发和临床应用提供重要参考,并为拓展儿科FMT市场提供有力支撑。
本文我们来详细了解一下这项研究。
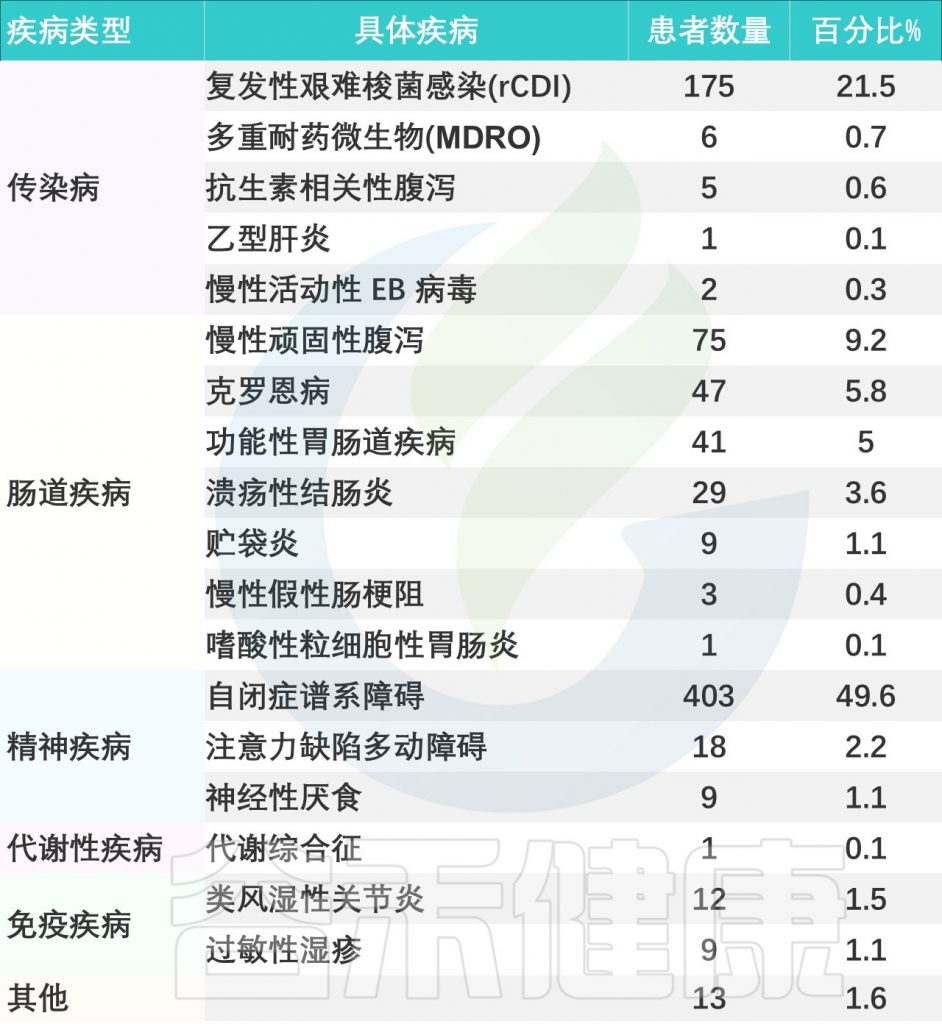
该研究回顾性分析了2013年12月~2023年12月在上海儿童医院接受 FMT 治疗的儿科患者,例如复发性艰难梭菌感染、抗生素腹泻、乙肝、慢性顽固性腹泻、炎症性、慢性肠假性梗阻、自闭症、多动症、神经性厌食症等,详见下表。
doi.org/10.1186/s12866-025-03858-z
患者特征详细分析
1. FMT相关不良事件
短期不良事件总发生率为5.8%(47/813例)
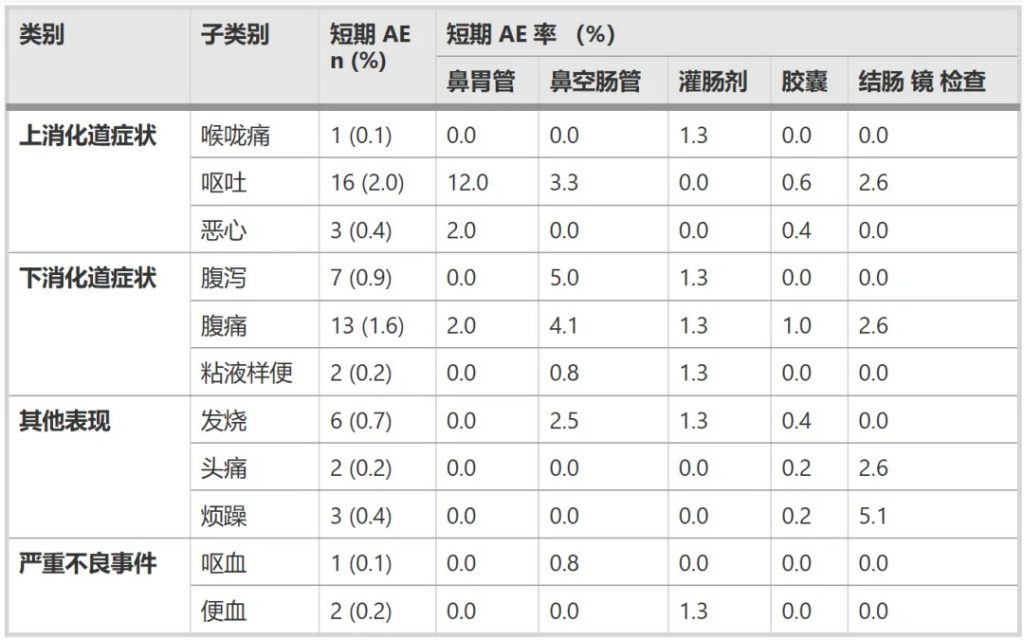
最常见的短期不良反应包括:
doi.org/10.1186/s12866-025-03858-z
2. 给药途径与不良事件关联
FMT 的给药途径在短期不良事件的发生中起着重要作用。
给药选择包括上消化道(UGI),例如使用鼻胃管或鼻空肠管、内窥镜检查、胶囊,以及下消化道途径(LGI),如保留灌肠、乙状结肠镜检查或结肠镜检查。
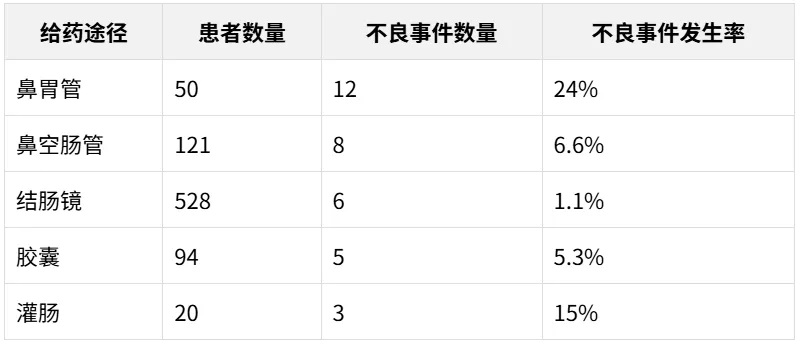
与其他途径相比,胶囊的短期不良事件发生率较低;鼻胃管(16.0%,8/50) 和鼻空肠管(14.0%,17/121) 的短期不良事件发生率更高。
FMT不同给药方式下的短期不良事件发生率(%)
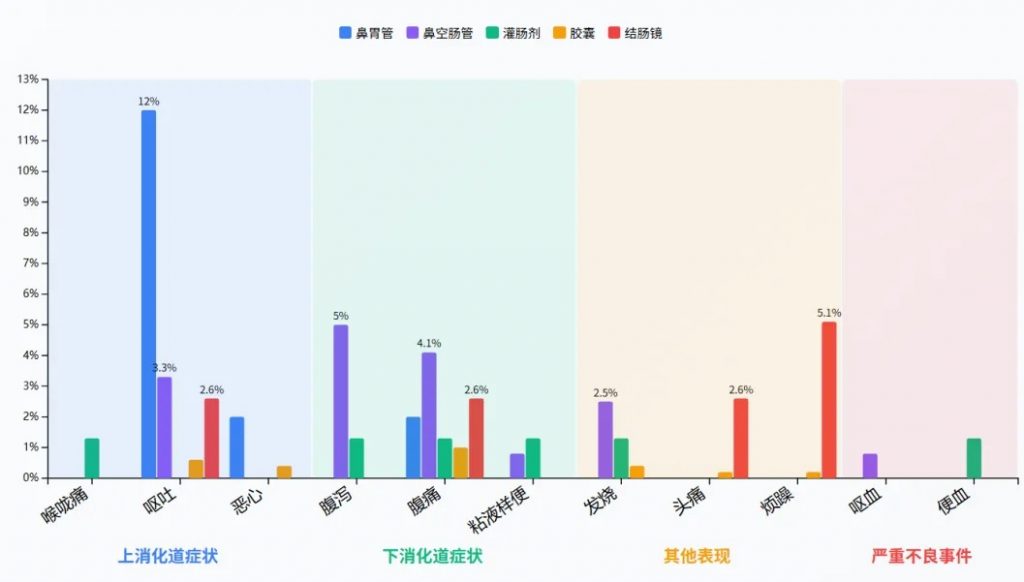
鼻胃管给药方式下,呕吐的发生率最高(12.0%),是所有给药方式中单一不良事件最高的发生率。
鼻空肠管给药方式下,腹痛(4.1%)和腹泻(5.0%)的发生率较高。
严重不良事件(呕血、便血)总体发生率极低(0.1%-0.2%)。
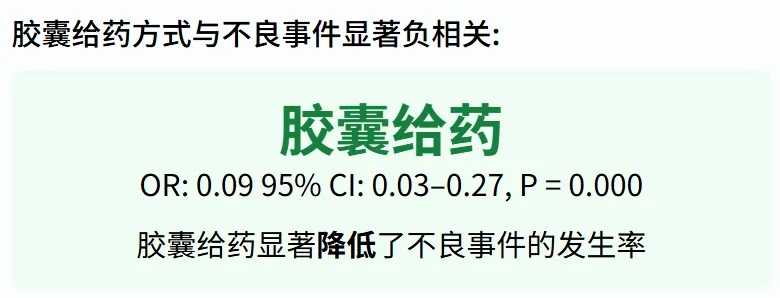
胶囊形式安全也更易于标准化生产、储存和运输,有利于FMT治疗的普及和推广。
3. 疾病类型与不良事件关联
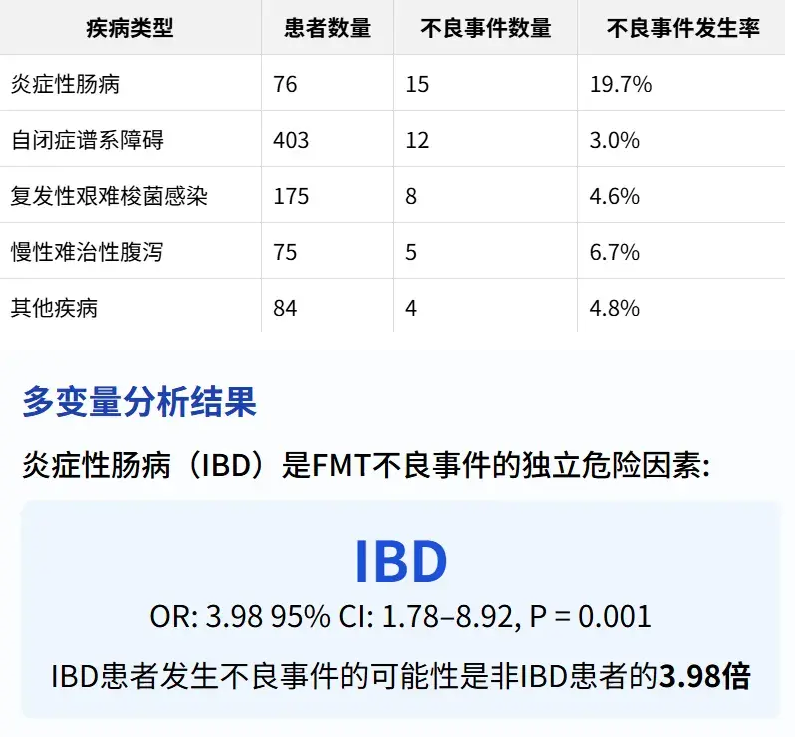
提示在产品开发中需针对IBD患者群体设计更安全的给药方案。
4. 长期随访结果
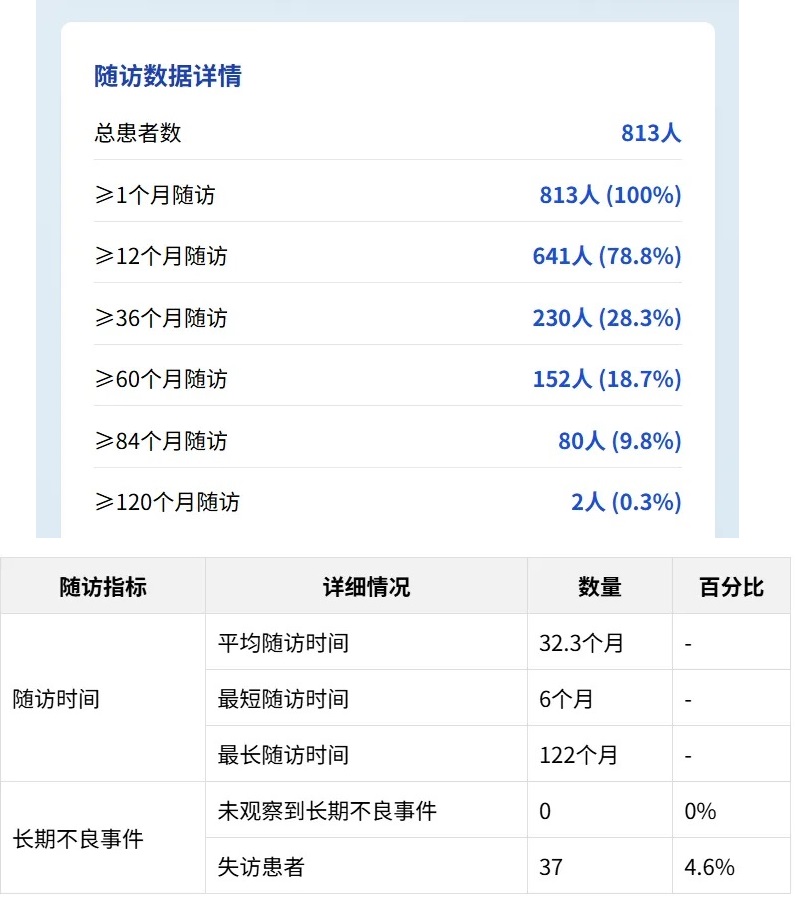
研究纳入813名患者,平均随访时间达32.3个月,最长随访期达122个月,形成了一个极具代表性的儿科FMT安全性数据库。
该研究作为迄今为止中国儿科领域样本量最大、随访时间最长的粪菌移植(FMT)安全性评估,具有较大的科学价值和临床指导意义。
这种大样本、长随访的队列设计克服了以往研究样本量小、随访时间短的局限性,为FMT安全性评估提供了更为可靠的证据。
且该研究覆盖了多种疾病类型和给药途径,包括感染性疾病、肠道疾病、精神疾病、代谢性疾病等多种适应症,以及鼻胃管、鼻空肠管、灌肠剂、胶囊和结肠镜等多种给药方式,能够指导不同疾病和不同情况下FMT的应用策略。
该研究提供的长期安全性数据将增强医患对FMT的接受度,促进其临床应用的规范化,也为微生物组治疗领域的产业化发展奠定了基础。未来,FMT产业有望通过以下方向发展:
未来需要加强微生物组移植后的菌群定植与功能研究,深入探索宿主-菌群互作机制,开发更加精准的微生物组干预策略。
随着高通量测序技术和人工智能技术的发展,FMT治疗前后的连续性菌群数据采集成为可能。这种基于海量微生物组动态变化数据的安全性评估,将远超传统的症状观察方法,能够在潜在安全问题出现前就发出预警,大幅提升FMT的安全性保障水平