-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
在人类肠道微生物组这个复杂的生态系统中,大多数物种的功能仍属未知。然而,有一株细菌因其在药物代谢、免疫调控和疾病关联中的突出作用,正从”默默无闻”走向”舞台中央”——它就是迟缓埃格特菌(Eggerthella lenta)。
迟缓埃格特菌(Eggerthella lenta)是一种革兰氏阳性、无芽孢、专性厌氧的放线菌,广泛存在于人体肠道中。它是少见的无糖代谢专性厌氧菌,代谢终产物乙酸盐作为碳源,同时主要依赖精氨酸脱亚胺酶途径来产生 ATP 能量。
长期以来,该菌因其能够使心脏药物地高辛失活而闻名。不仅如此,多数研究逐步证实在治疗帕金森病的药物左旋多巴的代谢链中,E.lenta 同样扮演了关键角色,能利用多巴胺脱羟酶(Dadh) 将粪肠球菌产生的多巴胺进一步转化为间酪胺。
这些发现表明,它就像是药物在体内命运的一个“隐形开关”然而,近十年来的研究揭示了E.lenta远超药物代谢的丰富生物学图景:它拥有独特的类固醇代谢能力、多样的植物多酚转化途径、复杂的菌株水平变异,并通过多种代谢产物和细胞组分深度调控宿主免疫系统。
E. lenta在炎症性肠病、类风湿性关节炎、多发性硬化、2型糖尿病、心血管疾病及多种肿瘤中呈现丰度变化,且能在特定条件下“揭竿而起”,成为导致高死亡率血流感染的“机会主义者”。与此同时,该菌也在百岁老人肠道中富集,具有抗菌、抗肿瘤等潜在有益作用。这种“亦敌亦友”的特性使其成为微生物组研究中最引人注目的物种之一。
编辑
近日, 美国加州大学Peter J. Turnbaugh 教授团队在《Nature Reviews Microbiology》(IF=104.6)发表综述,系统汇总迟缓埃格特菌代谢、免疫调控、菌株多样性及微生物编辑干预方案。本文以该综述为主要参考,探讨这一广泛存在却长期被忽视的肠道细菌,如何通过独特的代谢网络影响药物疗效、膳食成分转化及多种慢性疾病进程,并介绍针对该菌的精准干预方向,包括饮食调节、优化药物共给药、噬菌体治疗和 CRISPR 基因组编辑等。
▸ 迟缓埃格特菌的研究历史
迟缓埃格特菌(Eggerthella lenta)的研究历史可追溯至1935年,Eggerth首次从人类粪便中分离出这种革兰氏阳性、无芽孢的厌氧杆菌。
1938年,Prevot将其命名为迟缓真细菌(Eubacterium lentum),后于1999年基于系统发育证据重新分类至新建的埃格特菌属(Eggerthella),定名为Eggerthella lenta。
在随后的数十年中,该菌主要被视为一种低丰度的肠道共生菌,偶尔在菌血症等感染病例中被报道。直到2013年,Turnbaugh实验室在Science上发表里程碑式研究,证明E. lenta能够代谢并灭活强心苷类药物地高辛,且这一能力具有菌株特异性,这才真正点燃了学术界对该菌的研究热情。
此后十余年,随着高通量测序、比较基因组学、代谢组学、无菌动物模型及遗传操作工具的发展,E.lenta 的生物学特征得到迅速揭示。研究发现,该菌不仅含有参与强心苷还原的 Cgr 操纵子,还具备完整的类固醇代谢酶系,包括羟基类固醇脱氢酶(HSDH)、7α-脱水酶和 21-脱羟酶等,可转化胆汁酸和性激素。
2020—2022 年,多项研究阐明了 E. lenta 通过 Cgr2 调控 Th17 细胞活化、促进肠道炎症的机制,并发现其胆汁酸代谢产物可双向调节 T 细胞分化。2022 年,首个针对 E. lenta 的 CRISPR-Cas 基因组编辑工具问世,推动相关研究从描述性关联迈向机制性因果验证。2024—2026 年,研究进一步揭示了该菌参与糖皮质激素向孕激素转化、产生促炎脂质分子,以及其对胰腺癌可能具有的保护作用。
▸ E. lenta值得研究的原因
迟缓埃格特菌(Eggerthella lenta)之所以值得深入研究,至少有以下几方面原因:
• 第一:它在人类肠道中高度流行(约80%以上的健康成人携带),但丰度通常较低(<0.1%),这种”高流行、低丰度”的模式提示其可能发挥着与其数量不成比例的重要调控作用;
• 第二,全身的“机会主义者”:传统上,迟缓埃格特菌感染多与腹腔内感染(如阑尾炎、肠穿孔、肝脓肿)相关,这与其肠道定植的生态位相符。
最新的病例报道:一位78岁的男性糖尿病患者,在Fournier坏疽(一种会阴、生殖器区域的坏死性筋膜炎)手术后出现了脓毒症休克,血培养最终揪出了元凶:迟缓埃格特菌。这个病例警示我们,该菌的感染谱可能比我们想象的更广。
迟缓埃格特菌感染的高危人群:
• 第三:该菌的泛基因组高度开放,菌株间变异显著,不同菌株在药物代谢、免疫激活等方面可能表现出截然相反的表型,这对微生物组研究中”物种水平”的分析范式提出了挑战;
• 第四:E. lenta与数十种疾病存在关联,涵盖自身免疫病、代谢性疾病、心血管疾病、肿瘤和神经系统疾病,是连接肠道菌群与全身健康的重要节点;
• 第五:,该菌已具备遗传操作系统,是微生物组编辑和精准医学的理想靶点。
分类地位
E. lenta在分类学上隶属于:
埃格特菌科包含多个属,除Eggerthella外,还包括Gordonibacter、Slackia、Paraeggerthella、Adlercreutzia、Enterorhabdus等,这些菌在系统发育上关系密切,且普遍具有转化多酚和类固醇的能力。E. lenta的模式菌株为DSM 2243ᵀ(等同ATCC 25559ᵀ),于1935年由Eggerth分离。
形态和培养特征
E. lenta为革兰氏阳性杆菌(但在某些生长条件下或老龄培养物中可呈革兰氏染色不定),大小约为0.2-0.5 μm × 0.8-2.0 μm,不形成芽孢,不运动。
在厌氧条件下生长良好,最适生长温度为37°C。在血琼脂平板上培养48小时后,可形成直径0.5-2.0 mm的圆形、凸起、光滑、不透明的白色至灰色菌落。部分菌株可产生α溶血。
• 精氨酸是调控该菌免疫激活能力的重要物质
该菌生化反应不活泼,不发酵大多数糖类,不产生触酶和氧化酶。其生长严重依赖精氨酸,精氨酸通过精氨酸脱亚胺酶(arginine deiminase, ADI)途径代谢,产生鸟氨酸、氨和ATP。
早期研究表明,精氨酸是E. lenta的生长限制因子,在富含精氨酸的环境中生长显著增强。这一代谢特征后来被证明是调控该菌免疫激活能力的关键靶点。
流行率与人体分布
• 流行率较高但相对丰度较低
E. lenta是人类肠道中流行率最高的细菌之一。对超过168000份样本的整合分析显示,该菌在全球人群中的流行率超过80%。
然而,其相对丰度通常很低,在大多数健康成人中低于肠道菌群的0.1%。这种”高流行、低丰度”的分布模式提示E. lenta可能是一种”关键物种”,通过代谢活性而非数量优势来影响微生态和宿主生理。
• E. lenta主要定殖于人体结肠
E. lenta主要定殖于人类结肠,但在回肠中也可检出。除肠道外,该菌在口腔、女性生殖道中偶有报告。
值得注意的是,尽管该菌在人类肠道中高度流行,但在其他哺乳动物中并不常见。这种“人类特异性”定殖的机制尚不清楚,可能与宿主饮食、肠道生理环境或微生物竞争有关。
埃格特菌科的其他成员则在多种脊椎动物中广泛分布,提示E. lenta可能在进化过程中发生了宿主适应。
基因组特征
• 基因组基本特征
E. lenta模式菌株DSM 2243ᵀ的基因组大小约为3.1 Mb,GC含量约为64%,编码约2,800个蛋白质编码基因。随着菌株分离和测序工作的推进,目前已有数十个E. lenta基因组被测定和比较分析。
E. lenta的泛基因组呈现高度开放的特征。在2020年构建了包含24个菌株的比较基因组学工具箱,发现菌株间存在大量可变基因。最新的研究通过分析更多基因组,将E. lenta划分为两个系统发育亚群,其中一个亚群将越来越大比例的基因组用于移动元件防御,这反映了噬菌体和其他肠道移动元件对该菌施加的强烈选择压力。
• CRISPR-Cas系统与防御机制
E. lenta编码I-C型CRISPR-Cas3系统,这一内源性免疫系统后来被开发为基因组编辑工具。生物信息学分析从CRISPR间隔区中鉴定出13种不同的噬菌体,其中多种频繁受到CRISPR-Cas系统的靶向,表明噬菌体是E. lenta在肠道环境中的主要威胁之一。
除CRISPR系统外,E. lenta的泛基因组至少包含22类不同的防御系统,其中大多数具有菌株可变性。这些防御系统包括限制修饰系统、流产感染系统等,构成了多层防护网络。
• 拥有大量氧化还原酶
E. lenta的代谢多样性很大程度上依赖于其编码的大量氧化还原酶。比较基因组学分析显示,该菌编码多达651个氧化还原相关基因,约占其基因组的四分之一。这些酶利用铁硫簇、黄素、钼喋呤等辅因子,催化从类固醇还原到多酚脱羟基的各种反应。
厌氧呼吸与电子受体利用
E. lenta虽然不发酵糖类,但拥有强大的厌氧呼吸能力。它能够利用多种电子受体进行能量代谢,包括:
• 精氨酸:通过ADI途径,精氨酸不仅作为碳氮源,还可通过精氨酸-鸟氨酸反向转运产生质子动力。
• 有机酸:如乳酸,通过乳酸消旋酶和乳酸利用酶系进行代谢。
• 衣康酸(itaconate):这是一种宿主来源的免疫代谢物,由活化的巨噬细胞产生,具有抗菌活性。E. lenta能够利用衣康酸作为呼吸底物,这一能力由三个基因座(ita1、ita2、ita3)介导,且在该菌中高度保守。
在肺炎小鼠模型中,E. lenta在肺部的丰度与衣康酸浓度相关,提示该菌能够利用宿主炎症代谢物在炎症部位生存。
• 羟基肉桂酸类:如绿原酸、新绿原酸等,通过脱羟基反应转化为相应的儿茶酚衍生物。这种代谢能力可能有助于多酚类化合物的利用,并影响宿主的抗氧化和抗炎反应。
强心苷还原酶系统与地高辛代谢
E. lenta最著名的代谢能力是对强心苷类药物的还原灭活。强心苷是一类结构中含有甾体母核和不饱和内酯环的化合物,包括临床上广泛使用的地高辛(digoxin)和洋地黄毒苷(digitoxin),用于治疗心力衰竭和心房颤动。
2013 年发表于《Science》的研究首次证实,E.lenta 可将地高辛还原为无活性的二氢地高辛,但这一能力具有菌株特异性,仅部分菌株具备该活性。
地高辛治疗窗极窄,有效血药浓度仅为 0.5–2.0 ng/mL;微生物介导的药物灭活可能导致疗效不足。抗生素可暂时改变 E. lenta 的丰度和活性,进而影响地高辛血药浓度。2024 年一项研究进一步发现,肠道放线菌(包括 E. lenta)分泌的 P-糖蛋白 ATP 酶抑制剂可促进药物吸收,表明微生物不仅能直接代谢药物,还可通过调控宿主转运蛋白影响药物作用。
胆汁酸代谢
E. lenta 编码一套在肠道细菌中较为罕见的胆汁酸代谢酶系统。
• E. lenta通过胆汁酸代谢调控肠道免疫
其产生的胆汁酸代谢物不仅参与胆汁酸转化,还可调控宿主免疫反应:异脱氧胆酸(isoDCA)通过法尼酯 X 受体(FXR)影响树突状细胞,并促进调节性 T 细胞(Treg)分化;异石胆酸(isoLCA)和 3-氧代石胆酸(3-oxoLCA)可直接作用于 RORγt,抑制辅助性 T 细胞 17(Th17)分化。isoLCA 进一步转化生成的 isoalloLCA 则可增强线粒体活性氧产生、促进 FOXP3 表达,从而有利于 Treg 形成。
百岁老人肠道中 isoLCA 和 isoalloLCA 水平通常较高。这些代谢物既有助于维持免疫平衡,也能有效抑制艰难梭菌和耐万古霉素肠球菌,可能是其抵御肠道感染的重要因素之一。
植物多酚代谢
E. lenta 在植物多酚的微生物转化中发挥关键作用,尤其参与木脂素和鞣花单宁代谢,并可转化四大类结构各异的多酚化合物。
编辑
• E. lenta转化多酚释放健康潜能
E. lenta能够帮助人体转化多种植物多酚,尤其擅长分解和改造木脂素、鞣花单宁等成分。这些物质广泛存在于亚麻籽、芝麻、全谷物、浆果和核桃等食物中。
E. lenta编码的儿茶酚-O-脱甲基酶(如Demethylenateuteinase A, DmaA)负责将罗汉松脂素等木脂素O-脱甲基化为肠木脂素的前体。肠木脂素(肠二醇和肠内酯)具有弱雌激素活性、抗氧化和抗肿瘤特性。
E. lenta和近缘菌参与将鞣花单宁(存在于浆果、核桃等食物中)转化为尿石素的过程。2025年,研究发现了对映互补的肠道细菌酶,能够以不同立体化学方式代谢膳食多酚。
这表明,膳食和补充剂成分经 E. lenta 等肠道菌代谢后可转化为多种新化合物,其中部分具有弱雌激素、抗氧化和抗炎作用,进而影响人体健康。
氨基酸代谢
E. lenta 的生长和代谢高度依赖氨基酸,尤其是精氨酸。其精氨酸脱亚胺酶(ADI)途径可将精氨酸转化为瓜氨酸和氨,随后生成鸟氨酸和 ATP,从而提供能量、缓冲酸性环境,并为多胺合成提供底物。
此外,E. lenta 还可通过 Stickland 型反应代谢脯氨酸、亮氨酸和苯丙氨酸等多种氨基酸。2025 年研究表明,这类氨基酸发酵在复杂肠道菌群中的作用比此前认识更广泛。
E. lenta 的氨基酸代谢也与宿主免疫直接相关。Alexander 等发现,高精氨酸饮食可抑制 Cgr2 酶活性,阻断 E. lenta 激活 Th17 细胞,从而缓解小鼠结肠炎,为通过膳食氨基酸调控肠道免疫提供了新思路。
强大的类固醇激素代谢
E. lenta具有强大的类固醇转化能力,这在肠道细菌中极为罕见。除前述胆汁酸转化外,该菌还能:将皮质酮等糖皮质激素转化为孕酮等孕激素。这一转化需要与大肠杆菌共培养,利用其产生的氢气。
早期研究表明,E. lenta能够转化多种内源性和合成的性激素,这些激素经历肠肝循环。这一能力对生殖系统疾病的潜在影响正在受到关注。
其他药物和外源物代谢
除地高辛外,E. lenta还参与多种药物和外源化合物的代谢:
• 左旋多巴:在治疗帕金森病的药物左旋多巴的代谢链中,E. lenta 同样扮演了关键角色,能利用多巴胺脱羟酶(Dadh) 将粪肠球菌产生的多巴胺进一步转化为间酪胺。
• 甲氨蝶呤:甲氨蝶呤是一种常用的免疫抑制剂和抗肿瘤药物。甲氨蝶呤影响E. lenta等多种肠道细菌的保守代谢通路,导致宿主免疫激活降低。
• 辛伐他汀:2024年的研究发现,辛伐他汀可诱导E. lenta细胞表面基因的表达,提示药物-微生物互作不仅限于直接代谢。
• 咪唑丙酸:E. lenta参与组氨酸代谢产生咪唑丙酸的过程,该代谢物在2型糖尿病患者中升高,可通过mTORC1通路损害胰岛素信号传导。2025年的研究进一步证实咪唑丙酸是动脉粥样硬化的驱动因子和治疗靶点,并可调节下丘脑活动和应激相关行为。
微生物间互作
E. lenta在肠道中并非孤立存在,而是与其他微生物形成复杂的代谢互作网络。例如:
• 与大肠杆菌的共代谢:E. lenta的21-脱羟酶活性需要与大肠杆菌共培养,大肠杆菌产生的氢气为该反应提供了必要的还原力。这一发现强调了微生物互作在类固醇代谢中的关键作用。
• 木脂素转化的分工协作:在将植物木脂素(如罗汉松脂素)转化为肠木脂素(肠二醇和肠内酯)的过程中,E. lenta负责O-脱甲基化步骤,而其他肠道细菌(如Gordonibacter、Lactonifactor等)参与后续的脱羟基和环化反应。
• 苯乳酸(PLA)对金黄色葡萄球菌的抑制:E.lenta和其他肠道细菌通过Dao酶将饮食中的3,4-二羟基苯乳酸(DOPL)转化为苯乳酸(PLA),后者在体外和体内均能抑制金黄色葡萄球菌的生长和毒力。
• 合成群落中的抗病原菌作用:在艰难梭菌感染模型中,包含E. lenta的合成群落能够抑制艰难梭菌的生长,这与其产生的次级胆汁酸(如DCA)有关。
与免疫系统的相互作用
E. lenta 对宿主免疫的调控是近年来的研究热点。其通过代谢产物和细胞组分调节 T 细胞、B 细胞、树突状细胞及中性粒细胞等多类免疫细胞。
• Th17细胞激活:Cgr2-RORγt通路
Th17细胞是一类表达转录因子RORγt(视黄酸相关孤儿受体γt)并分泌IL-17A的CD4⁺辅助性T细胞,在黏膜防御和自身免疫病中发挥关键作用。2022年在Cell Host & Microbe上发表的研究揭示了E.lenta激活Th17细胞的分子机制:
编辑
这一发现的重要意义在于:它首次证明了一种肠道细菌的单个代谢酶可以直接调控宿主的T细胞分化和自身免疫进程,且该酶的活性可以通过膳食营养(精氨酸)进行精准调控。Cgr2由此成为连接微生物代谢、饮食和自身免疫性疾病的关键分子节点。
E. lenta代谢产物及细胞组分对宿主免疫功能的影响
编辑
• 胆汁酸对T细胞的双向调节
与Cgr2的促炎作用不同,E. lenta产生的胆汁酸代谢产物对T细胞具有抗炎和促炎的双重调节作用,这些看似矛盾的效应反映了E. lenta免疫调节的复杂性:同一菌株可以同时产生促炎和抗炎的代谢产物,其净效应取决于菌株的基因组成、代谢状态、微环境和宿主背景。
• B细胞与IgA应答影响肠道免疫
E. lenta 与 B 细胞的互作在多发性硬化(MS)中备受关注。MS 患者粪便中,E. lenta 是 IgA 包被比例最高的细菌之一,提示其可能被黏膜免疫系统识别为潜在致病原。
活动性脑炎症期间,IgA⁺ B 细胞增多并聚集于炎症病灶,可穿过血脑屏障。部分由脑脊液 IgA⁺ B 细胞克隆获得的抗体能够结合 E. lenta,且对其结合能力强于对宿主抗原,提示 E. lenta 特异性 B 细胞可能由肠道迁移至中枢神经系统并参与 MS 炎症。
E. lenta 这种肠道细菌可能通过两种方式影响炎症和免疫疾病:一方面,它参与生成一种叫作 TUDCA 的物质,TUDCA 能降低中性粒细胞的过度活跃,从而可能帮助缓解炎症;另一方面,E. lenta 某些蛋白与人体关节软骨中的 II 型胶原很相似,免疫系统可能因此“认错对象”,在攻击细菌时也误伤自身关节组织。这种分子模拟可能增强炎症信号、减少调节免疫反应的 Treg 细胞,并促进自身抗体产生,从而增加类风湿性关节炎发生或加重的风险。这说明E. lenta 具有“双重免疫调控作用。
迟缓埃格特菌(Eggerthella lenta)与多种疾病存在关联,这些关联的强度和证据级别各不相同。
1
炎症性肠病(IBD)
证据最充分
IBD(包括克罗恩病和溃疡性结肠炎)是E. lenta疾病关联研究中证据最充分的领域。
• 炎症性肠病患者中E. lenta丰度升高
多项宏基因组学研究一致显示,E. lenta在IBD患者粪便中显著富集。更精细的分析表明,IBD患者中富集的是特定的E. lenta菌株谱系,而非简单的物种水平丰度增加。表达cgr2的菌株与疾病严重程度的相关性尤为显著。
• 补充精氨酸可能改善结肠炎
膳食精氨酸补充能够抑制相关菌株的促 Th17 代谢活性,并缓解小鼠结肠炎,提示饮食—菌群—免疫轴可能成为 IBD 干预的研究方向。
需要指出的是,E. lenta在IBD中的富集也可能是疾病状态的结果而非原因。IBD患者肠道中精氨酸可用性增加、氧化还原环境改变、IgA产生增多等因素可能为E. lenta提供了竞争优势。
因此,E. lenta在IBD中可能扮演”加速器”而非”启动器”的角色。
2
类风湿性关节炎(RA)
证据来自多项独立研究
类风湿性关节炎(RA)是一种以关节滑膜炎和自身抗体产生为特征的自身免疫病。E. lenta在RA患者肠道中富集的证据来自多项独立研究。在动物模型中,E. lenta加重了胶原诱导的关节炎,增加了促炎细胞因子和类风湿因子水平。
• E. lenta促进类风湿关节炎的机制
机制上,E. lenta可能通过两条途径促进RA:一是Cgr2介导的Th17激活(Th17在RA发病中起核心作用);二是II型胶原模拟蛋白诱导的抗原特异性自身免疫。这两条途径可能协同作用,共同驱动关节炎症。
3
多发性硬化(MS)
证据强度一般
• E. lenta在多发性硬化患者中富集
多发性硬化(MS)是一种中枢神经系统脱髓鞘疾病。多项研究报告E. lenta在MS患者中富集。最引人注目的发现是E. lenta特异性IgA⁺ B细胞能够从肠道迁移至中枢神经系统,参与活动性病灶的炎症反应,这一发现为“肠-脑轴”在MS中的作用提供了具体的细胞和分子机制。
4
其他自身免疫性疾病
• 系统性红斑狼疮(SLE):未治疗的SLE患者肠道中E. lenta富集,且与自身免疫和促炎特征相关。
• 格雷夫斯病:患者肠道菌群组成和基因改变中,E. lenta被鉴定为特异性诊断生物标志物。
• 强直性脊柱炎和脊柱关节炎:E. lenta在患者中富集,但因果关系尚未建立。
• 白塞氏葡萄膜炎:报告了E. lenta的富集。
• 乳糜泻:仅治疗患者中显示富集,需排除治疗混杂因素。
• IgG4相关疾病和系统性硬化症:经模型调整后仍显示E. lenta富集。
5
代谢性疾病
• 2型糖尿病(T2D):E. lenta在T2D患者中富集。有研究通过纳入初治患者和糖尿病前期对照,部分排除了二甲双胍治疗的混杂影响。
机制上,E. lenta 可产生咪唑丙酸,该代谢物通过 mTORC1 损害胰岛素信号,并影响动脉粥样硬化和下丘脑功能。
• 终末期肾病:E. lenta在患者中富集,且动物实验支持其致病作用。
6
心血管疾病
• 动脉粥样硬化:E. lenta相关的咪唑丙酸被证明是动脉粥样硬化的驱动因子和治疗靶点。
• 急性冠脉综合征:未治疗患者中E. lenta富集。
• 心力衰竭:经模型调整后仍显示富集。
考虑到地高辛是治疗心衰和房颤的常用药物,而E.lenta能够灭活地高辛,该菌在心血管疾病中的作用具有双重意义:它既可能通过炎症代谢物促进心血管疾病,又可能直接影响心血管药物的疗效。
7
肿瘤
E. lenta与肿瘤的关系呈现复杂的双向模式:
• 胰腺癌:孟德尔随机化分析和小鼠实验均支持E.lenta对胰腺癌的保护作用,其机制涉及肿瘤浸润CD8⁺ T细胞和自然杀伤T细胞的增加。
• 结直肠腺瘤和息肉:E. lenta在腺瘤性息肉患者中减少,但在结直肠癌中的关联结果不一致。在粪便免疫化学试验阳性的人群中,E. lenta被报告为减少。
• 肺腺癌:在初治患者中富集。
这些结果提示,E. lenta在不同肿瘤类型和不同疾病阶段中可能扮演不同角色,从保护因子到风险因子都有可能。
8
炎症性肠病(IBD)
• 阿尔茨海默病:E. lenta在患者中富集。
• 重度抑郁症:报告了富集。
• 精神分裂症:仅在抗精神病药物治疗后富集,提示可能是药物效应而非疾病本身的特征。
• 慢性疲劳综合征/肌痛性脑脊髓炎:关联结果不一致,有报告减少,也有报告富集。
咪唑丙酸对下丘脑活动和应激相关行为的调节,以及E. lenta特异性B细胞向中枢神经系统的迁移,为理解”肠-脑轴”提供了新机制。
9
菌血症与机会性感染
尽管E. lenta通常被视为肠道共生菌,但在免疫功能低下、胃肠道屏障受损或存在腹腔感染灶的患者中,该菌可引起菌血症。
研究系统分析了 E. lenta 菌血症的临床和微生物学特征,发现其常与胃肠道恶性肿瘤、腹腔手术及憩室炎相关,且多为多微生物感染。该菌通常对甲硝唑、碳青霉烯类和氯霉素敏感,但对万古霉素和氨基糖苷类的敏感性差异较大。
潜在有益作用
与上述疾病关联形成对比的是,E. lenta也有许多的健康保护作用:
• 抗菌防御:E. lenta产生的DCA抑制艰难梭菌生长,isoLCA/isoalloLCA抑制艰难梭菌和耐万古霉素肠球菌,PLA抑制金黄色葡萄球菌。
• 抗病毒/抗真菌免疫:特定菌株激活Th17细胞,这可能增强对病毒和真菌感染的黏膜防御。
• 抗炎平衡:3-oxoLCA/isoLCA抑制Th17,isoDCA/isoalloLCA促进Treg,这些抗炎代谢产物可能帮助维持肠道免疫稳态。
• 长寿相关:百岁老人肠道中E. lenta产生的isoLCA和isoalloLCA水平升高,与抗菌防御和健康长寿相关。
▸ 饮食干预
饮食是调控肠道菌群最安全、最可行的手段。针对E. lenta的饮食干预策略包括:
①精氨酸补充
高精氨酸饮食(3% Arg)可抑制 Cgr2 活性,阻断 cgr2⁺ E. lenta 激活 Th17 细胞及加重结肠炎。
精氨酸经精氨酸脱亚胺酶途径代谢,高浓度可能通过改变细胞内氧化还原状态或竞争性结合 Cgr2 活性位点抑制其功能。需注意,精氨酸也是 E. lenta 的生长限制因子,过量摄入或可促进其增殖,整体效应仍待进一步研究。
② 多酚饮食
摄入富含木脂素(亚麻籽、芝麻、全谷物)、鞣花单宁(浆果、核桃)和羟基肉桂酸(咖啡、水果、全谷物)的食物,可以为E. lenta提供代谢底物,促进肠木脂素、尿石素和PLA等有益代谢产物的产生。
然而,由于E. lenta菌株的代谢能力存在个体差异,“精准营养”需要考虑个体的菌群组成。
③ 膳食纤维
虽然E. lenta不直接发酵复杂多糖,但膳食纤维通过改变肠道整体环境(pH、短链脂肪酸、微生物互作)间接影响E. lenta的丰度和活性。
④ 饮食模式
西方饮食(高脂肪、高蛋白、低纤维)与E. lenta丰度增加相关,而地中海饮食等富含植物性食物的饮食模式可能促进该菌的有益代谢活性。
▸ 药物共给药与剂量调整
① 地高辛与抗生素
当地高辛与抗生素合用时,E. lenta被抑制可能导致地高辛血药浓度升高和毒性风险增加。反之,携带cgr2⁺菌株的患者可能需要更高剂量的地高辛。临床建议在使用地高辛前检测E. lenta cgr2状态,并在抗生素治疗期间加强血药浓度监测。
② Cgr2抑制剂
基于Cgr2的酶学特征和结构,开发特异性抑制剂可能成为治疗cgr2⁺ E. lenta相关IBD和RA的新策略。精氨酸本身可作为天然抑制剂,但更强效和特异的小分子抑制剂有待开发。
③ P-糖蛋白调控
肠道放线菌分泌的P-糖蛋白ATP酶抑制剂可促进药物吸收,这一发现提示可以通过调控微生物来优化口服药物的生物利用度。
▸ 益生菌与工程菌
• 有益菌株的筛选:部分E. lenta菌株(如不表达cgr2但产生抗炎胆汁酸的菌株)可能作为下一代益生菌。然而,由于该菌的厌氧特性和潜在的机会性感染风险,安全评估需极为谨慎。
• 工程化E. lenta:2022年开发的CRISPR-Cas遗传工具使得工程化E. lenta成为可能。未来可以设计具有增强抗炎代谢产物产生、缺失致病基因(如cgr2)或携带治疗性分子的工程菌株。
• 合成菌群:构建包含E. lenta和其他协作菌的合成群落,用于特定代谢功能的重建(如木脂素转化或艰难梭菌抗性)。
▸ 噬菌体治疗
• 烈性噬菌体:从废水中分离的E. lenta噬菌体以及通过生物信息学预测的噬菌体为靶向清除特定致病菌株提供了可能。噬菌体治疗具有高度物种甚至菌株特异性,不会像抗生素那样破坏整个菌群。
• 工程化噬菌体:利用原噬菌体元件工程化改造的烈性噬菌体可用于递送CRISPR-Cas系统或其他治疗性载荷,实现精确的基因敲除或代谢调控。
然而,E. lenta强大的CRISPR-Cas防御系统和其他防御机制是噬菌体治疗面临的主要挑战。需要筛选能够逃避宿主防御的噬菌体,或开发联合策略来克服细菌耐药。
目前,DNA递送至肠道厌氧菌仍是技术瓶颈,但噬菌体和接合质粒的研究进展正在逐步克服这一障碍。
▸ 粪菌移植(FMT)的考量
在粪菌移植(FMT)实践中,供体和受体的E. lenta菌株类型可能影响移植效果。例如,向IBD患者移植不携带cgr2的E. lenta菌株可能有益,而移植cgr2⁺菌株则可能有害。未来的FMT可能需要对供体进行菌株水平的筛选。
主要参考文献
Rock R, Zhang S, Noecker C, et al. Eggerthella lenta: metabolism, pathogenesis and therapeutic implications[J]. Nature Reviews Microbiology, 2026: 1-14
Eggerth AH. The Gram-positive non-spore-bearing anaerobic bacilli of human feces. J Bacteriol. 1935;30(3):277-299.
Moore WEC, Cato EP, Holdeman LV. Eubacterium lentum (Eggerth) Prevot 1938: emendation of description and designation of the neotype strain. Int J Syst Bacteriol. 1971;21:299-309.
Noecker C, et al. Systems biology elucidates the distinctive metabolic niche filled by the human gut microbe Eggerthella lenta. PLoS Biol. 2023;21:e3002125.
Kageyama A, Benno Y, Nakase T. Phylogenetic evidence for the transfer of Eubacterium lentum to the genus Eggerthella lenta gen. nov., comb. nov. Int J Syst Bacteriol. 1999;49:1725-1732.
Gardiner BJ, et al. Clinical and microbiological characteristics of Eggerthella lenta bacteremia. J Clin Microbiol. 2015;53:626-635.
Bisanz JE, et al. A genomic toolkit for the mechanistic dissection of intractable human gut bacteria. Cell Host Microbe. 2020;27:1001-1013.e9.
Koppel N, Bisanz JE, Pandelia ME, Turnbaugh PJ, Balskus EP. Discovery and characterization of a prevalent human gut bacterial enzyme sufficient for the inactivation of a family of plant toxins. eLife. 2018;7:e33953.
Haiser HJ, et al. Predicting and manipulating cardiac drug inactivation by the human gut bacterium Eggerthella lenta. Science. 2013;341:295-298.
Parte A, et al. Bergey’s Manual of Systematic Bacteriology: Volume 5: The Actinobacteria. Springer; 2019.
Sperry JF, Wilkins TD. Arginine, a growth-limiting factor for Eubacterium lentum. J Bacteriol. 1976;127:780-784.
Liu Y, et al. Decoding the role of the arginine dihydrolase pathway in shaping human gut community assembly and health-relevant metabolites. Cell Syst. 2025;16:101292.
Reese AT, et al. Microbial nitrogen limitation in the mammalian large intestine. Nat Microbiol. 2018;3:1441-1450.
Little AS, et al. Dietary- and host-derived metabolites are used by diverse gut bacteria for anaerobic respiration. Nat Microbiol. 2024;9:55-69.
Koh A, et al. Microbially produced imidazole propionate impairs insulin signaling through mTORC1. Cell. 2018;175:947-961.e17.
Mastrangelo A, et al. Imidazole propionate is a driver and therapeutic target in atherosclerosis. Nature. 2025;645:254-261.
Agirman G, et al. The microbial metabolite imidazole propionate modulates hypothalamic activity and stress-induced behaviors. Cell Host Microbe. 2025;33:2030-2042.e9.
Dong X, et al. Genetic manipulation of the human gut bacterium Eggerthella lenta reveals a widespread family of transcriptional regulators. Nat Commun. 2022;13:7624.
Alexander M, et al. Human gut bacterial metabolism drives Th17 activation and colitis. Cell Host Microbe. 2022 Jan 12;30(1):17-30.e9.
Kyaw TS, et al. Human gut Actinobacteria boost drug absorption by secreting P-glycoprotein ATPase inhibitors. iScience. 2024;27:110122.
Maini Rekdal V, Bess EN, Bisanz JE, Turnbaugh PJ, Balskus EP. Discovery and inhibition of an interspecies gut bacterial pathway for levodopa metabolism. Science. 2019;364:eaau6323.
谷禾健康
随着全球人口老龄化加速,老年人多病共存与多重用药已成为常态,这给药物疗效和安全性带来了巨大挑战。
多药联用本身在控制多重危险因素、降低心脑血管事件方面具有明确获益;很多研究指出,多种药同时使用,住院、药物不良反应与全因死亡等风险往往显著上升。更棘手的是,在老年多病共存背景下,传统以单药证据为核心的处方逻辑,在面对真实世界的系统扰动时发现,同样方案,有人获益明显,有人疗效不足,甚至在疗效不佳的同时不良反应频发。
过去我们多从肝肾功能衰退、体成分变化、血浆蛋白结合率下降、受体敏感性改变,以及药物—药物相互作用来解释这种不确定性。但近十年的研究逐渐揭示一个被低估的关键变量:肠道菌群。
肠道菌群不仅能直接参与药物的转化、活化或灭活,还可通过代谢物谱改变、炎性衰老与屏障变化,沿着“代谢—免疫—屏障”三轴形成相互强化的级联反应,从而在药代动力学与药效学层面共同放大疗效波动与毒性风险。
基于此,本文围绕肠道菌群失调这一关键因素,阐述其通过”代谢—免疫—屏障“三轴相互作用,在老年多病共存与多重用药的临床背景下,对药物吸收、代谢和疗效的影响机制,并从代表性药物和治疗场景出发,阐明临床防治要点,为后续高质量试验设计与标准化评价体系的建立提供一些思考。
我们正处在一个不可逆转的全球老龄化时代。根据联合国的预测,到2050年,全球65岁以上的人口将占总人口的16.3%。
老年人普遍多病共存
世界卫生组织(WHO)将多病共存定义为”同一人体内存在两种或两种以上慢性疾病“。这听起来像是一个简单的数学叠加,实则是复杂的生物学重构。
流行病学数据显示,老年人群多病共存的患病率从15%-43%不等,且呈指数级增长。在我们国内,随着疾病谱从传染性疾病向慢性非传染性疾病转型,”高血压+糖尿病+冠心病+脑卒中“的组合已成为老年内科门诊的标准配置。
多药联用的益处和风险
为了管理多种慢性病,患者往往需要服用多种处方药。多药联用本身并非坏事。对于控制多重危险因素、预防心脑血管事件具有明确获益。但当药物数量超过5种时,风险陡然上升,例如住院率增加、药物不良反应增加、全因死亡风险上升。
在老年多病背景下,传统以单药证据为核心的处方逻辑,面对真实世界的系统扰动时,疗效与安全性的方差显著增大。
当多病共存遇上多重用药,药物的疗效和安全性变得极不确定。药物之间可能相互作用,而复杂的生理状况也让药物反应变得难以预测。这正是当前老年医学面临的核心难题之一。
传统观点认为,老年药代动力学改变主要源于肝肾功能衰退、脂肪/肌肉比例变化、血浆蛋白结合率下降。但近十年的研究揭示,肠道菌群构成了药物代谢的第三维度,在多药联用的老年人群中,这一维度的变异可能是疗效不确定性的最大来源。
肠道菌群:老年患者用药难题的关键一环
近年来的研究逐渐明确,肠道菌群不仅与消化相关,还深度参与免疫调控、代谢稳态与屏障维护。在老年人群中,其临床意义被进一步放大,原因主要有三点:
-个体差异更大
老年人因咀嚼/吞咽能力、胃肠动力、饮食结构与营养摄入能力变化,微生物群组成在个体间波动更明显。
-易受药物与疾病共同扰动
多病共存导致慢性炎症与器官轴(如肠-肝、肠-心、肠-肺)改变;多重用药(尤其抗生素、PPI、免疫抑制/抗肿瘤药物等)可改变群落结构与代谢功能。
特定药物和药物类别对肠道菌群影响的总结
编辑
doi: 10.1080/19490976.2025.2604867
-对药物治疗的影响:机制叠加而非单点效应
既往研究常把菌群影响分为三类来讨论。
问题在于:对老年多病共存患者而言,上述三类效应往往不是并列发生,而是形成相互强化的级联反应。也就是说,微生态失衡并非仅改变某一个药物的代谢,而是通过“代谢—免疫—屏障”三系统的协同失代偿,塑造一个对药物治疗不利的内环境:疗效更易不足,毒性更易放大,且波动更难预测。
下一章节,我们来详细了解代谢—免疫—屏障,它如何形成自我维持的恶性循环,并如何在药代/药效层面制造难以预测的真实世界差异。
在老年多重慢病与多重用药背景下,肠道微生态的紊乱正成为影响药物反应变异的新兴决定因素。菌群的异常不再局限于单一微生物水平的失衡,而会通过代谢-免疫-屏障三大系统的协同失代偿,引发药物动力学(PK)和药效学(PD)的广泛扰动。理清这种多轴联动机制,是实现精准干预的前提。
编辑
doi.org/10.1016/j.arr.2026.103023
代谢轴:药物转化的失控开关
很多口服药的结局,不只由肝肾功能决定——肠道菌群也在参与转化、激活、灭活与清除。
菌群主要从两条路影响用药
1) 直接改造药物分子
部分细菌能还原/脱羧/去甲基等,把药改形态,导致疗效或毒性变化。
2) 间接改造宿主代谢能力
健康菌群产生的短链脂肪酸、胆汁酸等代谢物,可影响肝脏药物代谢酶(如CYP、UGT等)的表达与活性;当菌群紊乱时,这类代谢物谱改变,可能让药物暴露升高或波动更大。
编辑
doi: 10.1080/19490976.2025.2604867
临床例子
注:老年人/多病共存/多药并用时,即使肝肾化验正常,也可能出现半衰期延长、血药浓度异常或ADR风险上升。
当遇到解释不清的疗效波动/不良反应,除了依从性、相互作用、肝肾功能,也可以把菌群状态纳入评估。
免疫轴:慢性低度炎症,正悄悄改写药物反应
老年人常见的菌群失调会提高机体对微生物相关分子(如LPS等PAMPs)的系统性暴露(其中一种来源是肠道通透性改变,下一个轴会详细了解),从而持续激活TLR4/NF-κB等通路,形成炎性衰老背景。
这会怎样影响用药?
1) 改变药代
慢性炎症可下调或扰动肝脏/肠道的药物处置系统(如部分CYP酶、转运体P-gp等),导致同样剂量出现血药浓度更高、波动更大,不良反应风险上升。
2) 改变药效
炎症会重塑靶器官微环境与免疫状态,使药物作用靶点是否可用、反应是否到位发生变化;在免疫相关治疗(如肿瘤免疫治疗、免疫抑制治疗、部分抗炎/免疫调节药)中尤其明显。
临床上你可能看到的矛盾现象
屏障轴:肠道屏障变薄,用药为什么不稳定?
在衰老、慢病与长期用药的叠加下,肠上皮修复能力下降,紧密连接与黏液层保护减弱,“肠漏”更常见——这不只是消化问题,也会直接影响药物反应。
两个核心后果
1) 吸收变得不确定
屏障受损与局部炎症会让肠道的通透性/转运发生改变:有的药吸收偏多,血药浓度升高;有的药吸收不稳,导致同剂量下疗效忽高忽低。
2) 全身稳态被扰动(并放大前两个轴)
屏障一旦松动,细菌成分与代谢产物更容易进入循环,促进低度炎症,进而影响肝药酶/转运体与靶器官微环境,从而形成肠漏 → 炎症 → 用药更波动的恶性循环。
临床上常见的表现
三轴不是并列问题,而是一个协同加剧的闭环
代谢-免疫-屏障三轴协同恶化的最终结果,是老年多病患者体内药物的药代动力学(PK,身体对药物的作用)和药效学(PD,药物对身体的作用)发生不可预测的改变。
PK改变
肠道屏障受损影响药物吸收;菌群代谢和肝脏酶活性改变影响药物的代谢和清除。这导致血药浓度要么过高(增加毒性风险),要么过低(导致治疗失败)。
PD改变
衰老本身就可能改变药物靶点(如受体)的敏感性。菌群失调引发的慢性炎症环境可以进一步改变靶组织的反应性,使得药物效果增强或减弱,或产生非预期的不良反应。
因此,理解这个三轴互作的复杂网络,对于在老年多病患者中实现安全有效的药物治疗至关重要。
老年多病状态下肠道菌群调节药物疗效的核心机制
编辑
doi.org/10.1016/j.arr.2026.103023
在处理患有多种疾病且服用多种不同药物的老年人时,肠道细菌与药物之间的关系变得至关重要。
老年多病患者的菌群失调与药物相互作用
编辑
doi.org/10.1016/j.arr.2026.103023
氯吡格雷 Clopidogrel
氯吡格雷是动脉粥样硬化性心血管疾病(ASCVD)二级预防中最常用的抗血小板药之一。但它有一个关键前提:需要在肝脏经CYP450酶系(尤其CYP2C、CYP3A相关通路)生物活化,才能产生真正抑制血小板的活性代谢物。
在多病共存的老年人群里,我们常看到“同样用药、抑制不够、血栓风险仍高”的情况。越来越多证据提示:肠道菌群失调及其引发的代谢—免疫—屏障轴紊乱,可能系统性地削弱氯吡格雷的有效反应。
下面我们来看这到底是怎么从肠道一路影响到血小板和肝脏的。
先决定药能不能起效——肝脏活化是门槛
氯吡格雷是典型前药(它最怕的是活化环节被压住):
老年人常合并慢性炎症、代谢异常、肝脏基础疾病、肠屏障受损与菌群失调——这些因素并不是彼此独立,而是会相互放大。
再看药效端:TMAO抬高血小板反应性,出现P2Y12旁路
肠道菌群可把膳食中的左旋肉碱、胆碱代谢成TMA,再由肝脏转化为TMAO进入循环。
TMAO升高不仅是风险相关指标,也可能参与机制:它可诱导TLR4介导的信号通路,机制研究提示可能促炎/促血栓,但尚需临床因果验证。
更关键的一点是“旁路效应”:即便P2Y12被抑制,血小板仍可能通过不依赖P2Y12的激活通路被推起来,于是临床上就表现为抗血小板效果不够/耐受倾向。
是谁在调CYP开关:T细胞与炎症信号如何改写药物活化?
CYP不是单纯的代谢酶,它受免疫—炎症信号调控。T细胞参与调控肝脏CYP2C与CYP3A表达,因此不同免疫状态下,氯吡格雷活化可能走向不同方向:
肠屏障受损经肠-肝轴放大炎症,压低CYP活化
多病共存老年人常伴慢性炎症、慢性肝病与心血管疾病,这些因素可破坏肠道紧密连接,增加通透性(也就是肠漏),促使炎症信号升级。系统性炎症常见TNF-α、IL-6升高,而这类促炎因子可能下调肝脏CYP酶,让氯吡格雷更难被充分活化。
菌群失调还可能伴随FXR–FGF15信号下降,扰动胆汁酸代谢,进一步削弱屏障与代谢稳态,让炎症-屏障受损-代谢紊乱更难刹车。
另一个值得关注的线索是黏膜免疫:肠黏膜免疫受损与致病共生菌(如AIEC)定植相关,提示IL-22信号受损;这会加重菌群失调与屏障障碍,经肠-肝轴放大代谢紊乱,并间接压低氯吡格雷的生物活化能力。
小 结
衰老肠道中的菌群失调触发代谢—免疫—屏障恶性循环,削弱氯吡格雷效应。
编辑
doi.org/10.1016/j.arr.2026.103023
三轴相互放大,最终削弱氯吡格雷的抗血小板作用。
地高辛Digoxin
地高辛是经典强心苷类药物,治疗窗很窄:剂量稍低可能无效,稍高就可能出现毒性与心律失常。因此,它对任何能改变肠道吸收、菌群代谢、炎症背景与转运蛋白(P-gp)的因素都格外敏感。
在多病共存的老年人群中,我们更容易看到“同样用药,却出现疗效不足或毒性增高、波动难控”的情况。由于其药代动力学特性较为敏感,容易受到患者肠道细菌影响。
菌群代谢:Eggerthella lenta如何把药变钝?
肠道共生菌 Eggerthella lenta 可通过其相关还原酶系统(如 强心苷还原酶)将地高辛转化为药理活性更弱/无活性的代谢物(二氢地高辛,dihydrodigoxin)。微生物失调导致该菌富集,从而使血清地高辛浓度降低至治疗阈值以下,最终因对心肌的正性肌力作用不足而导致心力衰竭治疗失败。
为什么炎症状态会把“窄治疗窗”变得更危险?
菌群失调不仅影响代谢,还可能通过免疫耐受破坏(如树突状细胞相关的免疫耐受下降)推动系统性炎症。与此同时,肠道屏障受损会促进LPS移位入血,激活TLR4通路,诱导TNF-α、IL-6等促炎因子升高。
对地高辛而言,这种炎症背景的风险在于:地高辛本就与心律失常风险相关,且其毒性更容易在电解质紊乱(如低钾)等情况下被放大。炎症信号进入心脏微环境后,可能增加心肌细胞的电不稳定性,从而提高地高辛相关心律失常的风险。
P-gp 如何决定地高辛的口服吸收上限?
地高辛是经典的 P-glycoprotein(P-gp)底物。P-gp 在肠上皮细胞腔面表达丰富,可把已吸收进入细胞的地高辛外排回肠腔,从而显著限制其通过肠壁进入血液的量,影响口服生物利用度。
动物证据也支持这一点:在保留人源 P-gp、缺失小鼠 P-gp 的模型中,口服后地高辛血浆浓度显著升高,提示P-gp外排是限制暴露的重要因素。因此从理论上说,抑制肠道P-gp活性,可能改善地高辛吸收。
老年多病共存为什么使地高辛疗效更不可预测?
多种因素叠加,使多因素健康问题老年人群中的药物相互作用更具变异性与不可预测性。
小 结
微生物可通过代谢—免疫—屏障三联机制调控地高辛的药代动力学与毒性。肠道菌群失调通过三条轴影响地高辛反应。
编辑
doi.org/10.1016/j.arr.2026.103023
二甲双胍Metformin
二甲双胍(metformin)作为2型糖尿病一线用药,其疗效部分依赖健康的肠道微生态环境;相反,菌群失调可能抑制二甲双胍的治疗效果。
代谢干扰:信号通路抑制与药物代谢加速
菌群失调(特别是拟杆菌属的丰度变化)可通过特定的酶学途径干扰二甲双胍的药代动力学和药效学。
免疫调节失衡:老龄化背景下的炎症干扰
在老龄化人群中,菌群失调与免疫系统的相互作用更为复杂。
屏障功能受损:系统性代谢紊乱的恶性循环
菌群失调导致的紧密连接蛋白降解和肠道通透性增加(即肠漏),不仅影响肠道局部环境,更具有全身性影响。
临床:多病共存老年患者适应不良
在多病共存老年人群中,肠道菌群失调会驱动一种不适应性的循环,形成代谢、炎症与免疫调控异常相互交织的三联网络。
肠道菌群在该循环三条轴中的作用,对于影响二甲双胍疗效至关重要。二甲双胍可作用于肠道微生物群以帮助调节代谢过程、调控免疫反应并维持肠屏障功能;然而,老年人中由衰老与多种慢性病共同导致的重度菌群失调也被证明会对上述结局产生负面影响。
在重度菌群失调状态下,二甲双胍对各轴的有益作用被削弱,最终导致其在多病共存老年患者治疗中的有效性出现极大异质性,甚至可能治疗失败。
小 结
肠道微生物群的代谢-免疫-屏障轴相互作用调控二甲双胍反应的变异性。在老年多病共存中,菌群失调通过相互关联的机制损害二甲双胍疗效。
编辑
doi.org/10.1016/j.arr.2026.103023
免疫检查点抑制剂ICIs
免疫检查点抑制剂(如抗PD-1/PD-L1抗体)的疗效高度依赖于机体的免疫基调(Immune Tone),而肠道菌群是这一基调的关键调节者。菌群失调通过干扰代谢重编程、加剧免疫衰老及破坏屏障功能,削弱T细胞的抗肿瘤应答。
代谢:短链脂肪酸匮乏,阻碍T细胞代谢重编程
在菌群失调期间,代谢轴的异常直接抑制了免疫细胞的抗肿瘤活性。
免疫衰老与分化失衡
老龄化背景下的菌群失调会加速免疫系统的无能化和肿瘤的免疫逃逸。
屏障破坏:系统性炎症干扰
菌群失调导致的物理屏障破坏是系统性干扰的源头。
总而言之,在老年多病患者中,一个失调的肠道菌群会从能量供应、免疫细胞平衡和全身炎症状态等多个维度,全面削弱ICIs的抗肿瘤效果。
小 结
肠道微生物群紊乱会破坏肿瘤微环境中的代谢—免疫—屏障网络,从而降低免疫检查点抑制剂(ICI)的疗效。菌群失调通过三轴失衡削弱ICI效应。
编辑
doi.org/10.1016/j.arr.2026.103023
全球人口老龄化与老年人多种慢性病患病人数增加并存。当前研究持续关注肠道微生物组失调与药物疗效之间的相互作用。
为有效应对这一问题,需要对更广泛且更具效能的治疗策略开展系统性研究与实施设计,并在三个层面的相互作用中统筹考量:代谢、免疫稳态与肠道屏障完整性。采用这一多维模型,可建立全面的调控框架,使研究者能够在系统层面借助网络药理学,精准靶向微生物组与药物治疗之间的相互作用。
益生菌
益生菌是调控肠道微生物组的多种方式之一,也是最常用的干预手段之一;其通常包含多种菌株,不同菌株因独特的代谢特征而产生不同治疗效应。
某些益生菌代谢产生的常见代谢物为短链脂肪酸(SCFAs)。研究表明,SCFAs可与CYP450酶(药物代谢酶家族的重要组成部分)直接相互作用;同时,SCFAs还可通过激活TLR/NF-κB通路增强机体免疫反应,并促进肠上皮细胞中紧密连接相关蛋白的生成。
与代谢类药物联用
多项研究提示,与不同种类的乳酸杆菌属和双歧杆菌属益生菌联用,可显著增强胰岛素、二甲双胍等降糖治疗的获益,其核心可归结为两条菌群介导的代谢调节路径:
不过总体来说仍然缺乏足够的预临床/小规模临床研究,高质量 RCT仍然不足。
-临床证据
胰岛素 + 乳酸杆菌
在1型糖尿病以及未使用其他降糖药的2型糖尿病人群中,联用可降低HbA1c;且这种改善与有益菌群上升(如 Bifidobacterium animalis、Akkermansia muciniphila)相关联。
二甲双胍 + 复合益生菌
例如以 L. rhamnosus Probio-M9、L. casei、L. plantarum P-8、以及 B. animalis subsp. lactis V9/M8(Probio-M8)等组成的组合,在与二甲双胍联用时可提升SCFAs水平,并通过改善胰岛素敏感性增强血糖调控。
抗感染与抗菌生态位竞争
乳杆菌补充剂具有一定的抗微生物效应,可在感染的预防与辅助治疗中发挥作用。其可能机制包括产生多种代谢物并改变局部理化环境,例如:
-代表性联合策略
Lacticaseibacillus paracasei LC11 + 蔓越莓 + D-甘露糖
可降低泌尿道感染复发(特定人群研究)。
乳酸杆菌/双歧杆菌 + 幽门螺杆菌三联疗法
提高根除率、并有望改善疗程耐受性。
肿瘤治疗支持
化疗与放疗常诱发显著的肠道菌群紊乱与黏膜损伤,进而表现为腹泻、黏膜炎、营养不良、炎症升高等一系列问题;在老年肿瘤患者中,这些问题更可能放大为剂量下降、延迟治疗甚至停药。
益生菌在这一场景下的价值更多体现为支持治疗。其有效性可归因于其能够稳定受损的肠道屏障并调节炎症和代谢。
鼠李糖乳杆菌GG+长双歧杆菌+嗜酸乳杆菌+粪肠球菌的组合
该组合已被证明能抵消这些影响。它们通过重建肠道紧密连接和减轻炎症来实现这一目标。
临床证据支持这一屏障恢复的重要性,它已与宫颈癌患者放疗引起的腹泻减少28%相关,从而减少了抗腹泻药洛哌丁胺的使用。
Bifidobacterium BB-536
可通过增加CD8⁺ T细胞向肿瘤浸润,增强抗PD-1免疫检查点抑制剂的疗效。
此外,益生菌通过减少体重增加、低密度脂蛋白(LDL)水平和与多西他赛治疗相关的菌群失调,有助于稳定代谢紊乱。
这些干预措施提高了患者的功能评分并改善了整体生活质量。总之,将益生菌纳入癌症治疗方案中可作为一项重要的支持性措施,有效减少肿瘤治疗相关的附带损伤,并提高患者对治疗方案的耐受性和依从性。
益生菌来源BEVs的跨器官信号:增强抗PD‑1免疫治疗的潜力
发表在《Nature Communications》的一项研究显示,肠道共生益生菌——双歧杆菌(Bifidobacterium)可释放细菌来源的细胞外囊泡(BEVs),这些BEVs能穿越肠屏障被机体吸收,并远程富集于肺癌肿瘤组织。
研究发现,BEVs可被肿瘤细胞摄取,通过TLR4–NF-κB信号上调肿瘤细胞PD-L1,并增强肿瘤微环境中免疫细胞的功能。
编辑
doi.org/10.1038/s41467-025-58553-4
动物实验中,联合给予BEVs和抗PD-1抗体可显著抑制肿瘤生长,较单用抗PD-1效果更佳。
编辑
doi.org/10.1038/s41467-025-58553-4
该机制提示,益生菌可能通过囊泡信号跨器官调节作用,帮助提升免疫治疗(如PD-1抑制剂)疗效。这为老年群体通过益生菌进行辅助抗肿瘤免疫调节提供了全新理论依据。
益生元
益生元(如菊粉与抗性淀粉)可作为有益菌群(如Faecalibacterium、Roseburia)的选择性底物,通过对有益菌的间接作用优化代谢—免疫串扰。
相较活菌制剂,益生元通常具有制剂稳定性更好、质量一致性更高、免疫安全性风险更低等优势,因此在体弱老年人或多病共存人群中,更适合作为低风险的长期辅助干预。
益生元的价值不止于改善菌,还可以作为饮食-微生物-药物三者之间的桥梁。通过改变菌群结构与代谢谱,进而影响宿主对药物的反应与耐受。
茯苓多糖 + 5-FU
动物研究提示其具有一定降毒/增效潜力——例如茯苓多糖可减轻5-FU相关体重下降与肠道损伤,可能与降低促炎因子、增强屏障功能及纠正菌群失调有关。
低聚果糖 + 二甲双胍
在饮食诱导肥胖动物中,低聚果糖与二甲双胍联用较单用进一步改善血糖与体重,并降低内毒素及炎症标志物水平,同时改善菌群。
多酚类既可被菌群转化为生物活性代谢物,也可反向塑造菌群组成,因此非常适合与药物形成代谢协同的联合策略。
多酚类+药物联合治疗非酒精性脂肪性肝病
编辑
doi.org/10.1016/j.jare.2024.03.004
粪菌移植(FMT)
粪菌移植(FMT)是一种独特疗法,通过递送健康供体的功能性菌群联合体来重建肠道微生态平衡。
FMT可调节胆汁酸代谢网络,并恢复产丁酸菌(如Faecalibacterium prausnitzii)的活性,以纠正菌群失调状态。
传统FMT给药方式包括结肠镜或灌肠;而口服胶囊递送与经内镜肠内管递送等新方式显著改善了患者耐受性与依从性。
与药物联用的证据示例
肿瘤免疫治疗(PD‑1/PD‑L1)
FMT可通过免疫重塑提高ICI疗效。
炎症性肠病(克罗恩病)
一项随机试点研究提示,FMT可能提高泼尼松龙治疗患者的临床缓解率,可能与屏障修复与SCFAs恢复相关。
高血压/心血管药物反应
在动物研究中,将“氨氯地平治疗后自发性高血压大鼠”的菌群移植给未治疗大鼠,可降低血压并改善血管舒张、氧化应激与Th17浸润等系统指标;而来自氢氯噻嗪处理动物的FMT未显示类似获益,提示FMT可能转移一种“代谢编程后的微生物表型”,但关键菌种与分子通路仍待明确。
目前FMT临床研究尚未形成标准化给药方案,因此需基于个体患者及其具体健康状态制定标准化剂量策略。迄今FMT研究主要聚焦于单次或短期治疗方案,尤其是在复发性艰难梭菌感染患者中;但对与衰老相关的虚弱等慢性状态的管理,可能需要重复和/或维持剂量方案。当前研究所收集的数据表明,老龄小鼠模型可产生与人类衰老相关的参考数据。
噬菌体疗法
噬菌体治疗是一种新型策略,利用噬菌体(感染细菌的病毒)对抗耐药菌感染,具有改变抗生素耐药性感染治疗范式的潜力。
通过靶向特定微生物,噬菌体可清除耐药病原体及相关菌群(如产生β-葡萄糖醛酸苷酶的E. coli),从而降低因抗生素相关毒素导致的药物再活化和/或代谢紊乱。例如,噬菌体能够从接受伊立替康治疗患者的肠道中清除产生β-葡萄糖醛酸苷酶的E. coli,从而阻止SN-38再活化所致的肠黏膜炎。
此外,这些噬菌体还可通过IL-22依赖的再生促进杯状细胞恢复,为黏膜屏障重建提供机制基础。病原清除与黏膜屏障重建的结合,对治疗多重耐药感染具有重要临床意义,尤其适用于老年人或免疫功能受损人群。
小鼠研究显示,经饮水口服给药(每日4×10⁸ PFU,连续31天)具有安全性证据;但目前尚未报道明确的人体剂量。
通过饮水口服噬菌体以改变肠道微生物组(并具良好安全性)具有前景,但仍需进一步研究以明确长期安全性与有效性,目前也缺乏既定的临床应用时间尺度。
饮食营养干预
营养饮食策略同样是调控肠道微生物群的主要手段之一,且具有多靶点特征。通过改变饮食结构(如增加高纤维食物摄入),可提升肠道微生物多样性并改善其功能,从而构建综合防御体系。
例如,摄入抗性淀粉或富含多酚的食物可改变肠道微生物对营养物质的代谢方式,并特异性触发有利于ICI发挥作用的不同通路。
锌与N-乙酰氨基葡萄糖可通过促进紧密连接相关蛋白(如ZO-2)生成以维持肠细胞间的致密连接,同时促进MUC2产生以利于损伤后修复,从而增强肠道保护层。
对于症状多样、且常合并多重用药的老年患者,单一疗法不足以应对复杂挑战。因此,有必要建立分层、整合的管理策略,以协调上述干预之间的相互作用。
例如,将益生元与工程化噬菌体联用,可在稳定代谢、可控调节细菌群落、以及具有抗炎特点的饮食干预之间形成协同,并与免疫功能与屏障功能改善相结合。
此外,可在全面评估个体肠型、用药史及动态微生物组特征的基础上,为患者制定个体化干预方案。通过组合这些治疗策略,或可提高特定药物或药物组合的治疗效应,降低多药并用导致不良事件的风险,并提升老年人健康管理的整体照护质量。
在老龄化与多病共存叠加的现实中,肠道微生物群已从背景因素走到台前:它通过代谢、免疫与屏障三条主轴,重塑药物疗效与不良反应的边界。现有从益生菌/益生元到FMT、噬菌体与饮食等多种工具,更多是可用的起点。
面向未来,关键在于把经验性调菌推进为可计算、可验证、可迭代的精准体系。
编辑
doi.org/10.1016/j.arr.2026.103023
一方面,以单细胞测序、空间转录组与代谢通量等多组学,在老年多病模型中绘制“宿主—微生物群—药物”互作图谱,解析微生物代谢物对CYP3A4、PD-1、Claudin-18等关键节点的时空调控;
另一方面,建立多中心、纵向随访队列,将标准化菌群检测纳入常规流程(基线分型与重复采样监测),持续记录菌群谱、用药史与结局,捕捉疗效波动及耐受/耐药的演化轨迹。
与之配套的是统一标准的微生物组—药物数据库与临床级算法:让AI/机器学习在临床试验中被严格验证,把高维数据转化为可预测的反应评估和可执行的干预建议。
这些数据的验证将推动针对多病老年人的个性化“菌群-药物”管理策略,提升多重用药安全性并促进健康老龄化。
更进一步,合成生物学有望带来可递送/可响应的智能工程菌、工程化噬菌体—纳米颗粒偶联体,并以连续菌群监测提供反馈,形成“检测—建模—干预—再检测”的闭环,使干预与个体衰老轨迹同频;同时也需以长期人群研究审慎评估气候与生态变化对微生物群及健康老龄化的潜在影响。
当然,前路仍有挑战,个体差异带来的可重复性问题、长期安全性与质控标准、以及高质量随机对照证据的缺口,决定了转化必须稳扎稳打——慢即是快。但方向已清晰:在多病共存与多重用药的时代,微生物群正在成为决定疗效与风险的重要变量。
主要参考文献
Yang D, Ren D, Zhang Y, Hao Y, Yue Y, Li Q, Fan Q, Sun C, Cui M, Zhang M. The gut microbiota dysbiosis in geriatric multimorbidity: Pharmacotherapeutic implications, pathophysiological mechanisms, and precision modulation strategies. Ageing Res Rev. 2026 Jan 13;115:103023.
Preet, R., Islam, M.A., Shim, J. et al. Gut commensal Bifidobacterium-derived extracellular vesicles modulate the therapeutic effects of anti-PD-1 in lung cancer. Nat Commun 16, 3500 (2025).
Li H, Liang J, Han M, Gao Z. Polyphenols synergistic drugs to ameliorate non-alcoholic fatty liver disease via signal pathway and gut microbiota: A review. J Adv Res. 2025 Feb;68:43-62.
Al-Btoosh S, Donnelly RF, Kelly SA. Microbes and medicines: interrelationships between pharmaceuticals and the gut microbiome. Gut Microbes. 2026 Dec 31;18(1):2604867.
de Ciutiis I, Djakovic S, Cagigas ML, Masedunskas A, Smith L, Franceschi C, Fontana L. Long-term fasting and its influence on inflammatory biomarkers: A comprehensive scoping review. Ageing Res Rev. 2025 Aug;110:102797.
Herisson FM, Cluzel GL, Llopis-Grimalt MA, O’Donovan AN, Koc F, Karnik K, Laurie I, Canene-Adams K, Ross RP, Stanton C, Caplice NM. Targeting the Gut-Heart Axis Improves Cardiac Remodeling in a Clinical Scale Model of Cardiometabolic Syndrome. JACC Basic Transl Sci. 2024 Nov 20;10(1):1-15..
谷禾健康
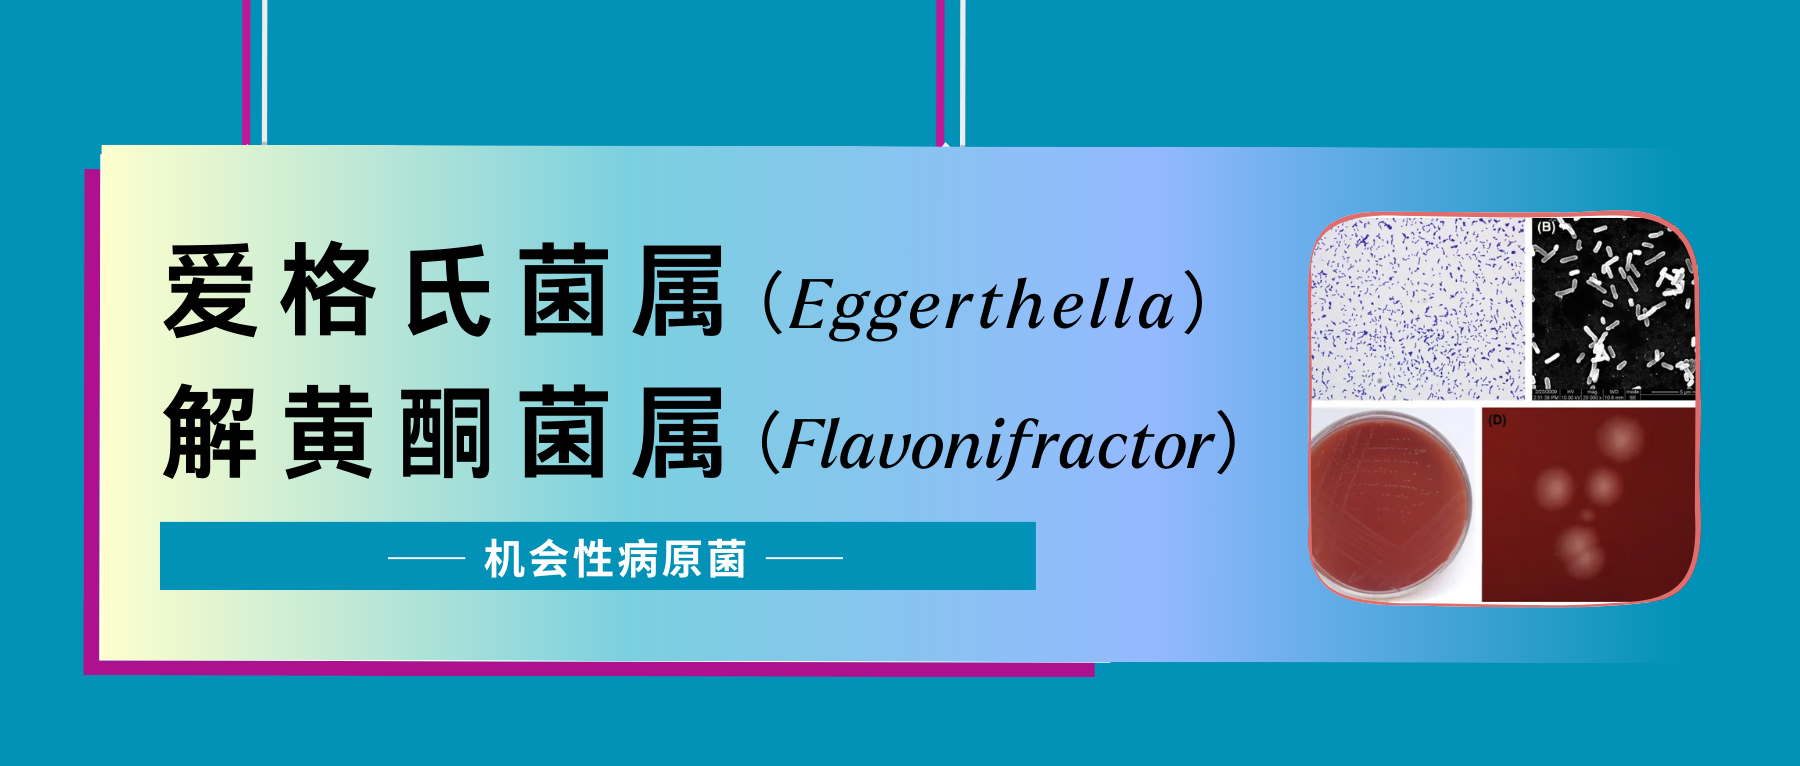
爱格氏菌属(Eggerthella),厌氧、不产生孢子、不活动的革兰氏阳性杆菌,是人类肠道微生物组的常见成员,人群检出率比较高,属于放线菌门。
大多数时候,Eggerthella与多种疾病相关
Eggerthella存在于人类结肠和粪便中,并被认为是溃疡性结肠炎、肝和肛门脓肿以及全身性菌血症的原因。
研究表明Eggerthella还与多种人类慢性疾病有关,包括哮喘、抑郁、肾病、多发性硬化症和类风湿性关节炎,尽管Eggerthella在这些疾病中的因果作用尚未确定。
哮喘
出生队列研究和大型国际研究发现哮喘与生命早期抗生素使用之间存在关联,特别是关于头孢菌素类和大环内酯类药物。研究发现,在大环内酯类暴露后观察到的Eggerthella水平增加了10倍。大多数Eggerthella是病原体并可能促进炎症反应。来自动物模型的实验证据表明,生命早期使用抗生素会破坏微生物群,从而破坏免疫系统的发育,导致易感个体的气道反应过度。
神经系统疾病
多项研究表明在抑郁,情感障碍以及精神分裂患者中Eggerthella丰度富集。
有16项观察到重度抑郁症患者和健康对照者之间的肠道微生物群组成存在显著差异。与健康对照相比,重度抑郁症患者的Eggerthella、Atopobium、Bifidobacterium的相对丰度增加,粪杆菌的相对丰度降低。
在患有认知障碍的老年人肠道中,Lachnospiraceae、Eggerthellaceae、Dorea、Blautia、Eggerthella的丰度减少,而Veillonellaceae增加。然而,在衰老过程中,这些变化并没有出现。表明衰老过程中和认知障碍特有的微生物群变化是独立于年龄的。
用于早期诊断肝细胞癌的微生物标志物
一项研究评估中国人群乙型肝炎病毒相关肝病(包括慢性乙型肝炎、肝硬化和肝细胞癌)肠道微生物组的改变,Eggerthella的相对丰度随着HC向慢性乙型肝炎和肝硬化的进展而逐渐降低,但在肝细胞癌中显著增加。
肌肉减少症合并肝硬化
肌肉减少症肝硬化患者的肠道微生物群缺乏与身体功能相关的细菌(甲烷杆菌、普雷沃氏菌和阿克曼菌),并且富含Eggerthella,这是一种虚弱的肠道微生物标志物。
肾病
在肾病中该菌的增加或减少有争议,在人类肾脏疾病的肠道微生物群数据库中发现 Eggerthella 属减少。然而,一项横断面研究,评估了中国原发性IgA肾病患者粪便菌群特征,与健康对照组相比,IgA肾病组中显著增加的属为Escherichia-Shigella、Hungatella、Eggerthella。
影响药物吸收和脂质水平
Eggerthella和相关的人类肠道Coriobacteriaceae 细菌还参与多种代谢转化,包括广泛使用的心脏药物地高辛的灭活、膳食植物化学物质的各种反应、儿茶酚的脱羟基以及胆汁的代谢酸。
一些Eggerthella菌株负责将地高辛转化为一种无活性的微生物代谢产物,限制了10%左右的患者吸收到系统血流中的活性药物的数量。 最近的研究证明,地高辛与抗生素或富含精氨酸的饮食共同给药,都会导致全身地高辛水平升高和药物水平的临床相关波动。
注:地高辛(Digoxin)是一种强心苷类药物,主要用于治疗心力衰竭和某些心律失常。
此外,Eggerthella与甘油三酯增加和高密度胆固醇减少存在相关性,它可通过将胆固醇转化为不可吸收的粪甾醇和粪甾酮,或将胆固醇转移至胆汁酸代谢过程中,直接限制体循环中的胆固醇水平,从而影响脑血管的发展。Eggerthella 也被证明参与生物活性次生植物化合物的代谢,例如葡萄中的白藜芦醇或大豆中的大豆苷元。
Eggerthella作为有潜在保护菌
谵妄被定义为一种突然、精神状态下降的临床综合征,其特征是意识模糊和认知状态波动,一项
大规模孟德尔随机化研究显示,Eggerthella属与谵妄的风险降低有关(P = 0.047)。
代表菌种:迟缓埃格特菌
该属的典型菌种是Eggerthella lenta(迟缓埃格特菌)。Eggerthella lenta 可引起血流感染,被认为是一种机会性人类病原体。
越来越多的研究表明,它也可能是人类的重要病原体,甚至在某些条件下引起危及生命的感染。Eggerthella lenta已从血液、脓肿、伤口、皮肤溃疡、产科和泌尿生殖道感染以及腹腔内感染中分离出来。
危险因素
危险因素包括免疫功能受损状态(类固醇使用、近期化疗、终末期肾病和糖尿病)、恶性肿瘤和胃肠道疾病,如溃疡性结肠炎和克罗恩病。
Eggerthella lenta菌血症最常见的潜在健康状况是实体癌或血液器官癌、糖尿病和心血管疾病。而所有这些患者的主要感染源是胃肠道、皮肤和软组织和脓肿。
在所有首发症状中,阑尾炎所占比例最高,远高于第二大的结肠炎。阑尾炎常伴有穿孔甚至腹膜炎。
Eggerthella lenta通常存在于消化道中,但可能会导致因胃肠道疾病导致粘膜内层破坏的患者或免疫系统受损的患者发生全身感染。然而,其他研究表明,患有癌症、褥疮、阑尾炎和糖尿病的患者更容易患迟缓埃格特菌菌血症。
Eggerthella lenta 非运动型革兰氏阳性杆状体和革兰氏染色形态
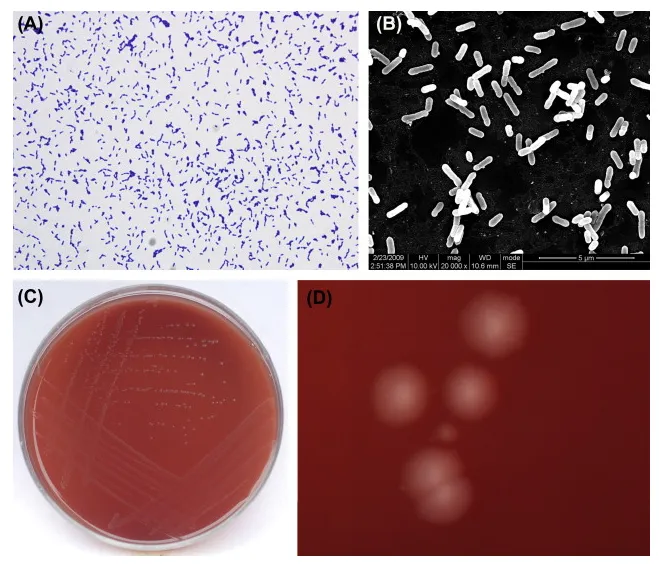
这些生物体能够扩展人类超级生物体的代谢潜力,在多糖的消化、维生素和氨基酸的合成以及内源性化合物的修饰中发挥重要作用。此外,它们在外源物质(包括药物、膳食化合物和环境毒素)的代谢中发挥着重要作用,影响这些化合物的生物利用度、活性和毒性。
例如,某些Eggerthella lenta菌株还可以使药物 L-多巴(一种用于治疗帕金森病的多巴胺的氨基酸前体)失活,因为该细菌能够将 L-多巴代谢物多巴胺脱羟基为间酪胺。
此外,Eggerthella lenta还会把白藜芦醇转化为二氢白藜芦醇。
有研究从人类肠道菌群中分离出一种能够有效代谢白藜芦醇的细菌Eggerthella lenta J01,通过诱导富集转录组学和生物信息学分析,研究人员进一步鉴定了来自 E. lenta J01 的白藜芦醇还原酶 (RER),该酶特异性催化白藜芦醇的 C9-C10 双键氢化并启动白藜芦醇的体内代谢。
注:RER及其同系物代表了一类新型的烯还原酶。健康个体肠道菌群中RER的丰度显著高于炎症性肠病患者,表明其至关重要的生理功能。
关于白藜芦醇和二氢白藜芦醇:
• 白藜芦醇
白藜芦醇是一种强抗氧化剂,可以中和自由基,减少氧化应激对细胞的损害。
潜在健康益处:
1.心血管健康:研究表明白藜芦醇有助于降低低密度脂蛋白胆固醇(LDL-C)水平,增强动脉弹性,减少心血管疾病的风险。
2.抗炎作用:白藜芦醇具有抗炎特性,可以减少炎症反应,对抗慢性炎症相关的疾病。
3.抗癌潜力:白藜芦醇的抗癌作用在实验室研究中得到了很大关注,它能抑制癌细胞的生长和扩散。
4.延缓衰老:白藜芦醇可能通过激活某些基因(如SIRT1)来延缓衰老过程。
• 二氢白藜芦醇
二氢白藜芦醇是白藜芦醇的代谢产物,通常通过肠道微生物的代谢活动生成。
潜在健康益处:
1.抗氧化作用:与白藜芦醇一样,二氢白藜芦醇也具有抗氧化特性,可以保护细胞免受氧化损伤。
2.抗炎作用:也具有抗炎特性,可能对抗慢性炎症。
3.肠道健康:作为肠道微生物代谢的产物,二氢白藜芦醇可能对肠道健康有益。
大多数研究集中在白藜芦醇上,而关于二氢白藜芦醇的研究相对较少。因此,更广泛且深入的研究可能仍需要对二氢白藜芦醇的确切健康益处进行验证。从现有研究来看,白藜芦醇因其广泛的健康效益被更多地关注和研究。
超过五十种不同的药物化合物已被确定对这种代谢改变敏感。参与这些生物转化过程的一种人类肠道共生细菌是迟缓埃格特菌(Eggerthella lenta) (以前称为迟缓真杆菌)。
该菌的名字来源于 Arnold Eggerth,他于 1935 年首次描述了这种细菌。从历史上看,由于该生物体生长缓慢且物种形成需要营养密集型,因此很难培养和鉴定。16S rRNA 基因测序的出现使得鉴定变得更加快速和准确。鉴于其高死亡率,由这种微生物引起的菌血症始终具有重要的临床意义,并需要立即寻找其来源。
干预
抗生素
尽管缺乏临床指南,但是治疗成功案例报告对抗迟缓肠球菌感染最有效的抗菌药物是甲硝唑、阿莫西林克拉维酸和碳青霉烯类;它对头孢曲松具有耐药性。
但之前的病例报告也报道使用广谱 β-内酰胺(例如碳青霉烯或哌拉西林-他唑巴坦)单一疗法或甲硝唑加 β-内酰胺联合疗法取得成功。
注:哌拉西林他唑巴坦 (TZP) 是一种覆盖厌氧菌的广谱联合抗菌剂,通常用于腹腔内感染的经验性治疗。
此外,头孢唑肟,也显示出良好的疗效。
中药
对抗生素诱导腹泻小鼠进行七味白术散灌胃3天后发现,可特异性地产生门乳糖酶的肠道菌群如放线菌门、厚壁菌门和变形菌门,具有明显的检测水平。与其他组相比,来自治疗组小鼠Acidovorax sp.KKs102、Stenotrophomonas sp. LMG11000、Pseudomonas oleovorans、 Eggerthella 、Burkholderia的乳糖酶基因表达更丰富。七味白术散治疗对腹泻的疗效可能与其促进新的或一些关键的乳糖酶产生菌株的生长有关。
一项随机对照研究显示,益肾化湿颗粒可降低慢性肾病患者蛋白尿,减轻肠道菌群失调,益肾化湿颗粒干预4个月后,Faecalibacterium、Lachnospiraceae、Lachnoclostridium、Sutterella等对机体有益的细菌相对丰度明显增加,而Eggerthella和Clostridium innocuum组等致病菌相对丰度降低。
益生菌
在12周植物乳杆菌Q180干预后,Eggerthella的丰度趋向于减少。Eggerthella所属的放线菌门在内源性脂质代谢中起作用,并且与血浆胆固醇呈正相关。此外,有研究通过年龄、性别和宿主基因分析了肠道微生物群与脂质水平的关系,发现Eggerthella属的丰度与其有显著正相关。在上述研究中,Eggerthella属被证明会增加血液甘油三酯水平并降低HDL胆固醇。因此,目前的结果表明,摄入植物乳杆菌Q180可能通过减少Eggerthella的水平来改善血脂。
长双歧杆菌(B.longum)可改善心血管疾病。研究人员通过体外厌氧发酵研究了从健康人粪便中分离的长双歧杆菌L556在冠心病患者中的作用。结果显示,在冠心病患者的肠道微生物群中,长双歧杆菌L556增加了乳酸杆菌、粪杆菌、普雷沃氏菌和Alistipes,同时减少厚壁菌/拟杆菌门、Eggertella、Veillonella、Holdemanella、Erysiperotrichacee_UCG-003。长双歧杆菌 L556还通过调节肠道微生物群和SCFAs等代谢产物来增强抗炎作用。此外,它还调节冠心病组发酵代谢产物中的脂质和氨基酸代谢。
饮食
调查研究发现健康饮食分数越高,该菌的丰度相对更低。■
•◆
Flavonifractor(解黄酮菌属)属于厚壁菌门,梭菌目,通常为革兰氏阳性,大多数物种形成椭圆形/球形内孢子,通常为过氧化氢酶阴性,大多数物种是专性厌氧的,尽管对氧气的耐受性差异很大。
肠道微生物群中 Flavonifractor 丰度升高与较高的情感障碍相关,吸烟和女性是造成这种关联的原因之一,可能导致氧化应激增强,以及儿茶酚途径和低度炎症有关。此外,肠癌或息肉病人该菌富集。
该菌的典型菌种是 Flavonifractor plautii ,是人类肠道微生物中一种常见的专性厌氧菌,通常黏附在肠壁上,在粪便中可提取得到。 Flavonifractor plautii可以通过裂解类黄酮分子的 C 环来降解类黄酮。黄酮类化合物是人类饮食的重要成分,主要由具有广谱药理活性的多酚类次级代谢产物组成。
几种常见的黄酮类食物,如茶、咖啡、苹果、番石榴、榄仁树皮、葫芦巴籽、芥菜籽、肉桂、红辣椒粉、丁香、姜黄和豆类,都含有大量的类黄酮。因此为了最大限度发挥类黄酮潜在有益作用和生物利用度,需要控制Flavonifractor plautii其丰度。
Flavonifractor 作为有益菌
肥胖
Flavonifractor 是肠道健康的重要菌群,其含量与肥胖呈负相关。
口服Flavonifractor plautii可减轻肥胖脂肪组织的炎症反应,F. plautii可能参与抑制炎症环境中的 TNF-α 表达。
前列腺癌
PRACTICAL 和 FinnGen 联盟汇总的数据结果表明,Eubacterium fissicatena和Odoribacter与前列腺癌风险增加有关。相反,Adlercreutzia、Roseburia、Holdemania、Flavonifractor、Allisonella属则是预防前列腺癌的潜在保护因素。
过敏(哮喘)
针对690名参与者生命第一年期间肠道微生物 (16S rRNA 测序)与随后的哮喘风险相关联研究显示,Veillonella与 5 年内较高的哮喘风险相关;而罗斯氏菌、Alistipes和Flavonifractor的相对丰度较高,与哮喘风险较低有关。
糖尿病
两项或以上研究中一致报告的变化,可以明显看出下列细菌在糖尿病前期和新发糖尿病中有所增加,包括乳杆菌、链球菌、埃希氏菌、Veillonella 、Collinsella等,而普拉梭菌、Roseburia、Dialister、Flavonifractor、 Alistipes、Haemophilus 、Akk菌则减少。这些菌作为健康生物标志物的作用已被广泛认可,其有益效果主要归因于其生产短链脂肪酸,尤其是丁酸盐的能力,这对于维持肠道屏障的完整性、能量稳态、减轻炎症和调节血糖反应起着重要作用。
其他
个别研究报道,口服 Flavonifractor plautii(一种在绿茶摄入量中增加的肠道细菌)可通过抑制 IL-17 信号传导促进小鼠急性结肠炎的恢复。
口服 Flavonifractor plautii 可有效抑制小鼠的 Th2 免疫反应,可能有助于减轻抗原诱导的 Th2 免疫反应。
与Flavonifractor 过高相关的疾病
神经系统疾病(抑郁、认知障碍)
肠道微生物群中Flavonifractor 丰度升高与较高的情感障碍相关,Flavonifractor属的种类增加和抑郁症相关。
注:一项研究显示,在重度抑郁症和所有个体中,Flavonifractor 与疲劳呈正相关。
Flavonifractor与新诊断的双相情感障碍有关。
NEAD 研究 (左) 和BIO研究 (右) 中情感障碍 (AD) 患者、其未受影响的亲属 (UR)和健康个体 (HC) 中Flavonifractor的流行率
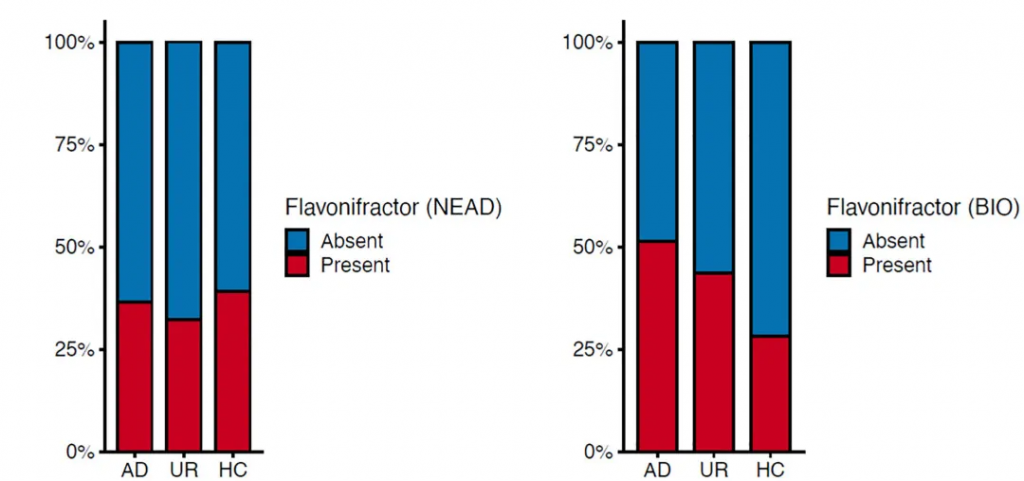
doi.org/10.1016/j.pnpbp.2021.110300
一项双样本孟德尔随机化研究显示,鞘磷脂水平与Flavonifractor呈负相关 (p = 0.026, beta 95%CI = -0.218 [-0.411, -0.026]) 。鞘磷脂代谢异常可能与阿尔茨海默病的发病机制有关。在患有认知障碍的老年个体中, Flavonifractor 属也被发现有所增加。
结直肠癌
肠癌或息肉病人该菌富集。
来自江南大学食品科学与技术国家重点实验室团队的对 85 名接受结肠镜检查的结直肠癌患者的样本进行了 16S rRNA 测序、代谢组学和蛋白质组学研究,结果发现Catabacter、Mogibacterium的相对丰度从粘膜内癌到晚期持续增加,而Clostridium、Anaerostipes、Vibrio、Flavonifractor、Holdemanella和Hungatella仅在中期病变中发生显著改变。
血清代谢组学发现,在中期病变阶段,胆素、甘油酯和核苷水平最高,而胆汁酸和氨基酸水平最低。
食管癌
食管癌是目前全球最常见的恶性肿瘤之一,发病率位居第九位。食管癌可分为两种主要病理亚型:食管鳞状细胞癌(ESCC)和食管腺癌(EAC)。
一项双样本孟德尔随机化研究显示,在食管腺癌 (EAC) 的情况下,Flavonifractor表现出正相关性。
慢性心力衰竭合并心房颤动
小型研究显示,慢性心力衰竭合并心房颤动患者肠道菌群显著富集在Flavonifractor属(p=0.003,FDR p adj =0.12)和 L-赖氨酸生物合成途径(p=0.04,FDR p adj =0.26),而Alistipes属(p=0.02,FDR p adj =0.29)和淀粉降解(p=0.02,FDR p adj =0.26)和糖酵解(p=0.03,FDR p adj =0.26)途径,相对缺乏。
慢性肾病
根特大学医院招募的 110 名非慢性肾病和慢性肾病患者,Flavonifractor属在慢性肾病个体中的水平高于非慢性肾病个体。
泌尿道结石
泌尿道结石可引起一系列并发症,如尿路阻塞、感染、不适以及对肾脏的潜在不可逆损害。
一项双向双样本孟德尔随机化研究显示,Flavonifractor 属丰度增加(IVW OR = 0.69,95%CI 0.53-0.91,P = 8.57 × 10⁻³)与尿路结石形成风险降低之间存在因果关系。
肌肉减少症
肌肉减少症是一种与年龄相关的全身性骨骼肌疾病,其特征是肌肉质量损失和肌肉功能下降,它会增加跌倒、骨折、残疾等有害后果的风险。与 正常骨骼肌质量组相比,低骨骼肌质量组中的Flavonifractor属大幅增加。
酒渣鼻(红斑痤疮)
一项横断面对照试点研究显示,与年龄和性别匹配的对照者相比,红斑痤疮中的Flavonifractor plautii显著增加(coef. 0.011,p = 0.037)。
注:被认定为诱发红斑痤疮的食物比有益食物多。主观上认为酒精是主要的饮食诱因,其次是香料、精制糖、油炸/油腻食物、热食、咖啡、乳制品、肉类和糖替代品。而蔬菜、水果、鱼、益生菌、茶、全麦和豆类被认为是最有利的。
典型菌种 Flavonifractor plautii
Flavonifractor plautii,是人类肠道微生物中一种常见的专性厌氧菌,通常黏附在肠壁上,在粪便中可提取得到。这个细菌还有一个超能力,它可以「吃掉」红细胞的 A 抗原。
Flavonifractor plautii可以通过裂解类黄酮分子的 C 环来降解类黄酮。黄酮类化合物是人类饮食的重要成分,主要由具有广谱药理活性的多酚类次级代谢产物组成。从流行病学、临床前和临床研究中积累的证据支持这些多酚在预防癌症、心血管疾病、2 型糖尿病和认知功能障碍方面的作用。
Flavonifractor plautii 改善动脉硬化程度
人类粪便宏基因组测序显示,在正常对照组中,F. plautii丰度显著较高,并在微生物群落中处于中心地位,而在动脉僵硬度升高的受试者中,F. plautii缺失。此外,血压只部分介导了F. plautii对降低动脉僵硬度的影响。
正常对照组的微生物组表现出增强的糖酵解和多糖降解能力,而动脉僵硬度增加的受试者的微生物组则以脂肪酸和芳香族氨基酸的生物合成增加为特征。
整合代谢组学分析进一步表明,顺式乌头酸的增加是F. plautii对动脉硬化保护作用的主要效应物,通过抑制基质金属蛋白酶-2的激活,维持弹性纤维网络,缓解动脉功能障碍。
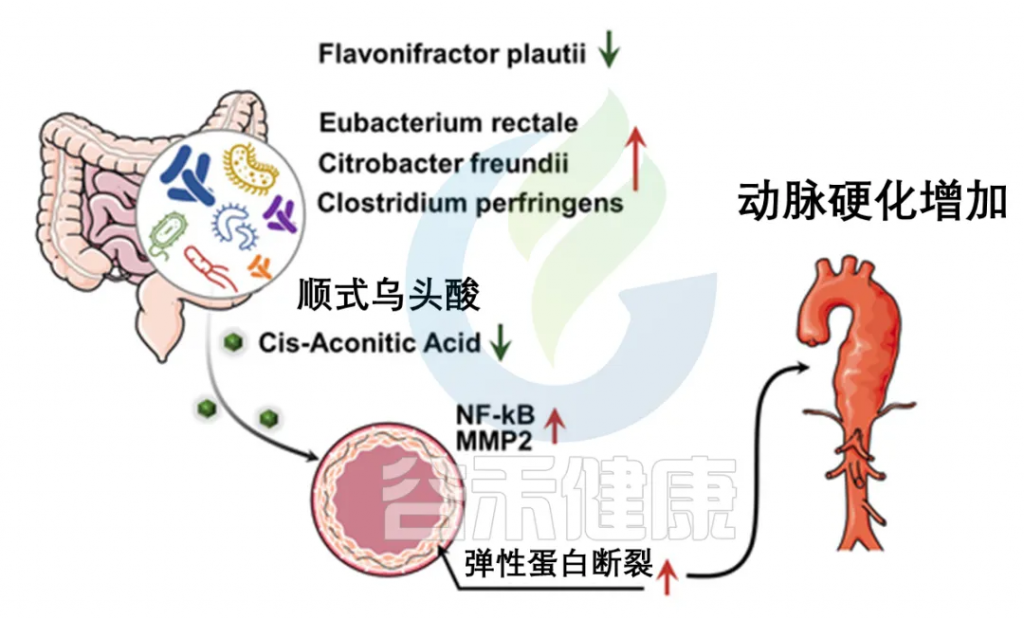
doi.org/10.1161/CIRCRESAHA.122.321975
如何调节
★ 增加
一项随机、单盲、平行组、安慰剂对照研究显示,红茶摄入增加了肠道中Flavonifractor plautii的数量,尤其是在基线水平较低的个体中。
一项交叉研究显示,乳制品摄入会改变高胰岛素血症个体的肠道微生物群组成,其中Faecalibacteria(p = 0.05)和Flavonifractor(p = 0.06)丰度增加,Flavonifractor的丰度变化与HOMA-IR的变化呈负相关。
注:HOMA-IR为胰岛素抵抗的稳态模型评估
在一项小鼠实验中,帕金森患者在7天的利福昔明治疗在治疗6个月后导致Flavonifractor的相对丰度增加,血浆促炎细胞因子水平的变化与基线血浆白细胞介素-1α水平呈负相关。
膳食纤维改善了结肠炎引起的肠道微生物种类减少问题。其中可溶性膳食纤维的效果更明显:大豆壳膳食纤维通过调节肠道菌群和抑制TLR-4/NF-κB信号通路来缓解BALB/C小鼠的炎症,在属水平上Barnesiella、乳杆菌、瘤胃球菌、Flavonifractor的相对丰度都比正常对照组更高。
在结肠癌模型中,小蘖碱治疗改善了隐窝的发育不良和粘膜中的腺瘤增生,并减少了结肠癌的发生。此外,小蘖碱治疗后放线菌门、疣微菌门、双歧杆菌、Barnesiella和Odoribacter的相对丰度减少,而Alloprevotella、Flavonifractor、 Oscillibacter和副拟杆菌的相对丰度增加。
★ 减少
一项研究显示,灰树花杂多糖在喂食高脂饮食的大鼠中改善非酒精性脂肪肝的能力。与高脂饮食组相比,补充灰树花杂多糖组的大鼠肠道菌群中Flavonifractor显著降低。
一项多中心、随机、双盲、安慰剂对照临床试验的结果显示,与安慰剂相比,乳香树提取物治疗后,非酒精性脂肪肝患者Flavonifractor相对丰度较低。
贝特类药物治疗后,非酒精性脂肪肝患者肠道菌群中的Flavonifractor下降。
注:关于非酒精性脂肪肝患者黄酮类化合物特征的数据是矛盾的,与健康人相比,其水平要么增加,要么减少。
一项针对复发性尿路感染女性的安慰剂对照研究,长期每日食用蔓越莓,研究组之间检测到的唯一显著差异是Flavonifractor属 OTU41,与安慰剂消费者相比,蔓越莓消费者的OTU41相对丰度显著降低。
注:有研究表明,24 周内每天饮用蔓越莓饮料的复发性复发性尿路感染患者中,复发性尿路感染症状减少了 39%。
一项随机对照实验显示,食用油炸肉的受试者的IGI值(胰岛素生成指数)低于对照组,但胰岛素和脂多糖、TNF-α、IL-10和IL-1β水平的MIRI(肌肉胰岛素抵抗指数 )和AUC值较高(P < 0.05)。油炸肉摄入降低了Lachnospiraceae、Flavonifractor,增加了Dialister、Dorea 、Veillonella丰度 (FDR <0.05)。油炸肉类的摄入会影响肠道菌群和微生物宿主共代谢物,从而损害血糖稳态并增加肠道内毒素和全身炎症水平。
注:该研究中共 117 名超重成年人被随机分为两组。59 名参与者每周提供四次煎炸肉类,58 名参与者被限制食用煎炸肉类。
一项随机临床试验比较低FODMAP黑麦面包与普通黑麦面包对肠易激综合征患者肠道菌群的影响,结果显示食用低FODMAP黑麦面包减少了拟杆菌、Flavonifractor、Holdemania、Parasutterella和克雷伯菌的丰度,并显示出双歧杆菌增加的趋势。Flavonifractor利用γ-氨基丁酸(GABA)作为生长基质,因此该菌过多的话可能减少肠道中的GABA含量。由于GABA在肠道中具有多种调节作用,包括减少通便时间和缓解疼痛,增加谷物纤维摄入会减少IBS患者体内“食GABA”菌Flavonifractor的数量。通过饮食调整减少Flavonifractor丰度并增加双歧杆菌丰度可能有助于缓解IBS患者的腹痛或加速通便时间。
注:在患有功能性胃肠道疾病的自闭症儿童的直肠黏膜中发现了较高水平的Flavonifractor,尤其是那些报告有腹痛的儿童。Flavonifractor的数量与组织活检样本中的5-羟色胺水平呈线性相关。在抑郁成年人的粪便中也检测到了较高水平的Flavonifractor。这些都加强了进一步研究的理由,以阐明Flavonifractor、肠道疼痛和情绪障碍之间的联系。
主要参考文献:
Wang J, Guo R, Ma W, Dong X, Yan S, Xie W. Eggerthella lenta Bacteremia in a Middle-Aged Healthy Man with Acute Hepatic Abscess: Case Report and Literature Review, 1970-2020. Infect Drug Resist. 2021 Aug 19;14:3307-3318.
Wong D, Aoki F, Rubinstein E. Bacteremia caused by Eggerthella lenta in an elderly man with a gastrointestinal malignancy: A case report. Can J Infect Dis Med Microbiol. 2014 Sep;25(5):e85-6.
James A S, Chaudhari D S, Jain S, et al. Specific Microbiome Signature Dynamics Could Predict Aging Continuum and Cognitive Impairment in Older Adults[J]. Physiology, 2024, 39(S1): 1991.
Hu, X., Du, J., Xie, Y. et al. Fecal microbiota characteristics of Chinese patients with primary IgA nephropathy: a cross-sectional study. BMC Nephrol 21, 97 (2020)
Vázquez-Martínez ER, García-Gómez E, Camacho-Arroyo I, González-Pedrajo B. Sexual dimorphism in bacterial infections. Biol Sex Differ. 2018;9(1):27.
Cho G.-S., Ritzmann F., Eckstein M., Huch M., Briviba K., Behsnilian D., Neve H., Franz C.M.A.P. Quantification of Slackia and Eggerthella spp. in human feces and adhesion of representatives strains to Caco-2 cells. Front. Microbiol. 2016;7:658.
Haiser H.J., Seim K.L., Balskus E.P., Turnbaugh P.J. Mechanistic insight into digoxin inactivation by Eggerthella lenta augments our understanding of its pharmacokinetics. Gut Microbes. 2014;5:233–238.
Yu H, Wan X, Yang M, Xie J, Xu K, Wang J, Wang G, Xu P. A large-scale causal analysis of gut microbiota and delirium: A Mendelian randomization study. J Affect Disord. 2023 May 15;329:64-71.
Gupta RS, Chen WJ, Adeolu M, Chai Y. Molecular signatures for the class Coriobacteriia and its different clades; proposal for division of the class Coriobacteriia into the emended order Coriobacteriales, containing the emended family Coriobacteriaceae and Atopobiaceae fam. nov., and Eggerthellales ord. nov., containing the family Eggerthellaceae fam. nov. Int J Syst Evol Microbiol. 2013 Sep;63(Pt 9):3379-3397.
Korpela, K., Salonen, A., Virta, L. et al. Intestinal microbiome is related to lifetime antibiotic use in Finnish pre-school children. Nat Commun 7, 10410 (2016).
Koppel N., Bisanz J.E., Pandelia M.-E., Turnbaugh P.J., Balskus E.P. Discovery and characterization of a prevalent human gut bacterial enzyme sufficient for the inactivation of a family of plant toxins. eLife. 2018;7:e33953.
Dong X, Zhang J, Li W, et al. Yi-Shen-Hua-Shi regulates intestinal microbiota dysbiosis and protects against proteinuria in patients with chronic kidney disease: a randomized controlled study[J]. Pharmaceutical Biology, 2024, 62(1): 356-366.
Ponziani FR, Picca A, et al., GuLiver study group. Characterization of the gut-liver-muscle axis in cirrhotic patients with sarcopenia. Liver Int. 2021 Jun;41(6):1320-1334.
Park, Y.E.; Kim, M.S.; Shim, K.W.; Kim, Y.-I.; Chu, J.; Kim, B.-K.; Choi, I.S.; Kim, J.Y. Effects of Lactobacillus plantarum Q180 on Postprandial Lipid Levels and Intestinal Environment: A Double-Blind, Randomized, Placebo-Controlled, Parallel Trial. Nutrients 2020, 12, 255
Yang, L., Wu, Y., Zhao, X. et al. An In Vitro Evaluation of the Effect of Bifidobacterium longum L556 on Microbiota Composition and Metabolic Properties in Patients with Coronary Heart Disease (CHD). Probiotics & Antimicro. Prot. (2024).
Claus S.P., Ellero S.L., Berger B., Krause L., Bruttin A., Molina J., Paris A., Want E.J., de Waziers I., Cloarec O., et al. Colonization-induced host-gut microbial metabolic interaction. mBio. 2011;2:e00271-10.
Bode L.M., Bunzel D., Huch M., Cho G.-S., Ruhland D., Bunzel M., Bub A., Franz C.M.A.P., Kulling S.E. In vivo and in vitro metabolism of trans-resveratrol by human gut microbiota. Am. J. Clin. Nutr. 2013;97:295–309.
Kawada Y., Goshima T., Sawamura R., Yokoyama S., Yanase E., Niwa T., Ebihara A., Inagaki M., Yamaguchi K., Kuwata K., et al. Daidzein reductase of Eggerthella sp. YY7918, its octameric subunit structure containing FMN/FAD/4Fe-4S, and its enantioselective production of R-dihydroisoflavones. J. Biosci. Bioeng. 2018;126:301–309.
Gardiner B.J., Tai A.Y., Kotsanas D., Francis M.J., Roberts S.A., Ballard S.A., Junckerstorff R.K., Korman T.M. Clinical and microbiological characteristics of Eggerthella lenta bacteremia. J. Clin. Microbiol. 2015;53:626–635.
Ugarte-Torres A., Gillrie M.R., Griener T.P., Church D.L. Eggerthella lenta bloodstream infections are associated with increased mortality following empiric piperacillin-tazobactam (TZP) Monotherapy: A Population-based Cohort Study. Clin. Infect. Dis. 2018;67:221–228.
Koh A., Molinaro A., Ståhlman M., Khan M.T., Schmidt C., Mannerås-Holm L., Wu H., Carreras A., Jeong H., Olofsson L.E., et al. Microbially produced imidazole propionate impairs insulin signaling through mTORC1. Cell. 2018;175:947.e17–961.e17.
Luo S, Zhao Y, Zhu S, Liu L, Cheng K, Ye B, Han Y, Fan J, Xia M. Flavonifractor plautii Protects Against Elevated Arterial Stiffness. Circ Res. 2023 Jan 20;132(2):167-181.
Karpat I, Karolyi M, Pawelka E, Seitz T, Thaller F, Wenisch C. Flavonifractor plautii bloodstream infection in an asplenic patient with infectious colitis. Wien Klin Wochenschr. 2021 Jul;133(13-14):724-726.
Pan Y, Su J, Liu S, Li Y, Xu G. Causal effects of gut microbiota on the risk of urinary tract stones: A bidirectional two-sample mendelian randomization study. Heliyon. 2024 Feb 14;10(4):e25704.
Amerikanou C, Kanoni S, Kaliora AC, Barone A, Bjelan M, D’Auria G, Gioxari A, Gosalbes MJ, Mouchti S, Stathopoulou MG, Soriano B, Stojanoski S, Banerjee R et al., Effect of Mastiha supplementation on NAFLD: The MAST4HEALTH Randomised, Controlled Trial. Mol Nutr Food Res. 2021 May;65(10):e2001178.
Coello K, Hansen TH, Sørensen N, Ottesen NM, Miskowiak KW, Pedersen O, Kessing LV, Vinberg M. Affective disorders impact prevalence of Flavonifractor and abundance of Christensenellaceae in gut microbiota. Prog Neuropsychopharmacol Biol Psychiatry. 2021 Aug 30;110:110300.
Mehrotra, I, Snyder, M, Mamic, P. CHARACTERIZING THE GUT MICROBIOTA AND THEIR INTERACTIONS WITH THE HOST IN THE CHRONIC HEART FAILURE-ASSOCIATED ATRIAL FIBRILLATION. J Am Coll Cardiol. 2024 Apr, 83 (13_Supplement) 1033.
Stokholm J, Blaser MJ, Thorsen J, Rasmussen MA, Waage J, Vinding RK, Schoos AM, Kunøe A, Fink NR, Chawes BL, Bønnelykke K, Brejnrod AD, Mortensen MS, Al-Soud WA, Sørensen SJ, Bisgaard H. Maturation of the gut microbiome and risk of asthma in childhood. Nat Commun. 2018 Jan 10;9(1):141.
Wang, L., Zheng, Yb., Yin, S. et al. Causal relationship between gut microbiota and prostate cancer contributes to the gut-prostate axis: insights from a Mendelian randomization study. Discov Onc 15, 58 (2024).
Jian Gao, Xiaoyu Guo, et al., The Association of Fried Meat Consumption With the Gut Microbiota and Fecal Metabolites and Its Impact on Glucose Homoeostasis, Intestinal Endotoxin Levels, and Systemic Inflammation: A Randomized Controlled-Feeding Trial. Diabetes Care 1 September 2021; 44 (9): 1970–1979.
Mavrogeorgis, E.; Valkenburg, S.; Siwy, J.; Latosinska, A.; Glorieux, G.; Mischak, H.; Jankowski, J. Integration of Urinary Peptidome and Fecal Microbiome to Explore Patient Clustering in Chronic Kidney Disease. Proteomes 2024, 12, 11.
Hong, C.-T.; Chan, L.; Chen, K.-Y.; Lee, H.-H.; Huang, L.-K.; Yang, Y.-C.S.H.; Liu, Y.-R.; Hu, C.-J. Rifaximin Modifies Gut Microbiota and Attenuates Inflammation in Parkinson’s Disease: Preclinical and Clinical Studies. Cells 2022, 11, 3468.
Yang L, Lin Q, Han L, et al. Soy hull dietary fiber alleviates inflammation in BALB/C mice by modulating the gut microbiota and suppressing the TLR-4/NF-κB signaling pathway[J]. Food & function, 2020, 11(7): 5965-5975.
Tomioka R, Tanaka Y, Suzuki M, et al. The Effects of Black Tea Consumption on Intestinal Microflora—A Randomized Single-Blind Parallel-Group, Placebo-Controlled Study[J]. Journal of Nutritional Science and Vitaminology, 2023, 69(5): 326-339.
Cheng H, Liu J, Tan Y, Feng W, Peng C. Interactions between gut microbiota and berberine, a necessary procedure to understand the mechanisms of berberine. J Pharm Anal. 2022 Aug;12(4):541-555.
He, L., Liu, Y., Guo, Y. et al. Diversity of intestinal bacterial lactase gene in antibiotics-induced diarrhea mice treated with Chinese herbs compound Qi Wei Bai Zhu San. 3 Biotech 8, 4 (2018)
Straub, T.J., Chou, WC., Manson, A.L. et al. Limited effects of long-term daily cranberry consumption on the gut microbiome in a placebo-controlled study of women with recurrent urinary tract infections. BMC Microbiol 21, 53 (2021).
Laatikainen, R., Jalanka, J., Loponen, J. et al. Randomised clinical trial: effect of low-FODMAP rye bread versus regular rye bread on the intestinal microbiota of irritable bowel syndrome patients: association with individual symptom variation. BMC Nutr 5, 12 (2019).
Xu YJ, He Y, Chen C, Shi J, He M, Liu Y, Zhang Y, Liu Y, Zhang Y. Multiomics Analysis Revealed Colorectal Cancer Pathogenesis. J Proteome Res. 2024 Apr 18.