-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
从秋分到寒露,温差骤大、草木转黄,我们的餐桌也悄然换季——夏日的西瓜冷饮退场,热气腾腾的炖菜、板栗、红薯与秋梨纷纷登场。
然而,身体的“秋燥反应”也接踵而至:喷嚏流涕止不住、皮肤干燥湿疹复发、排便干结腹胀,甚至莫名陷入失眠与“悲秋”情绪……
很多人将这些归咎于干燥或着凉,但你体内的“第二基因组”其实早已察觉。谷禾健康基于14.6万余份真实世界检测样本发现,中国人群的肠道菌群存在显著的季节节律:入秋后,发酵代谢相关的菌群(如 Phascolarctobacterium升高29.0%、巨单胞菌升高27.2%)出现剧烈波动。
肠道菌群也有季节节律:来自谷禾健康 14.6 万份样本的真实世界观察
庞大的样本提示我们人体肠道菌群季节生态节律与“四时取象”理念,人体微生态在秋季面临气温骤降、日照缩短与秋燥应激的考验。
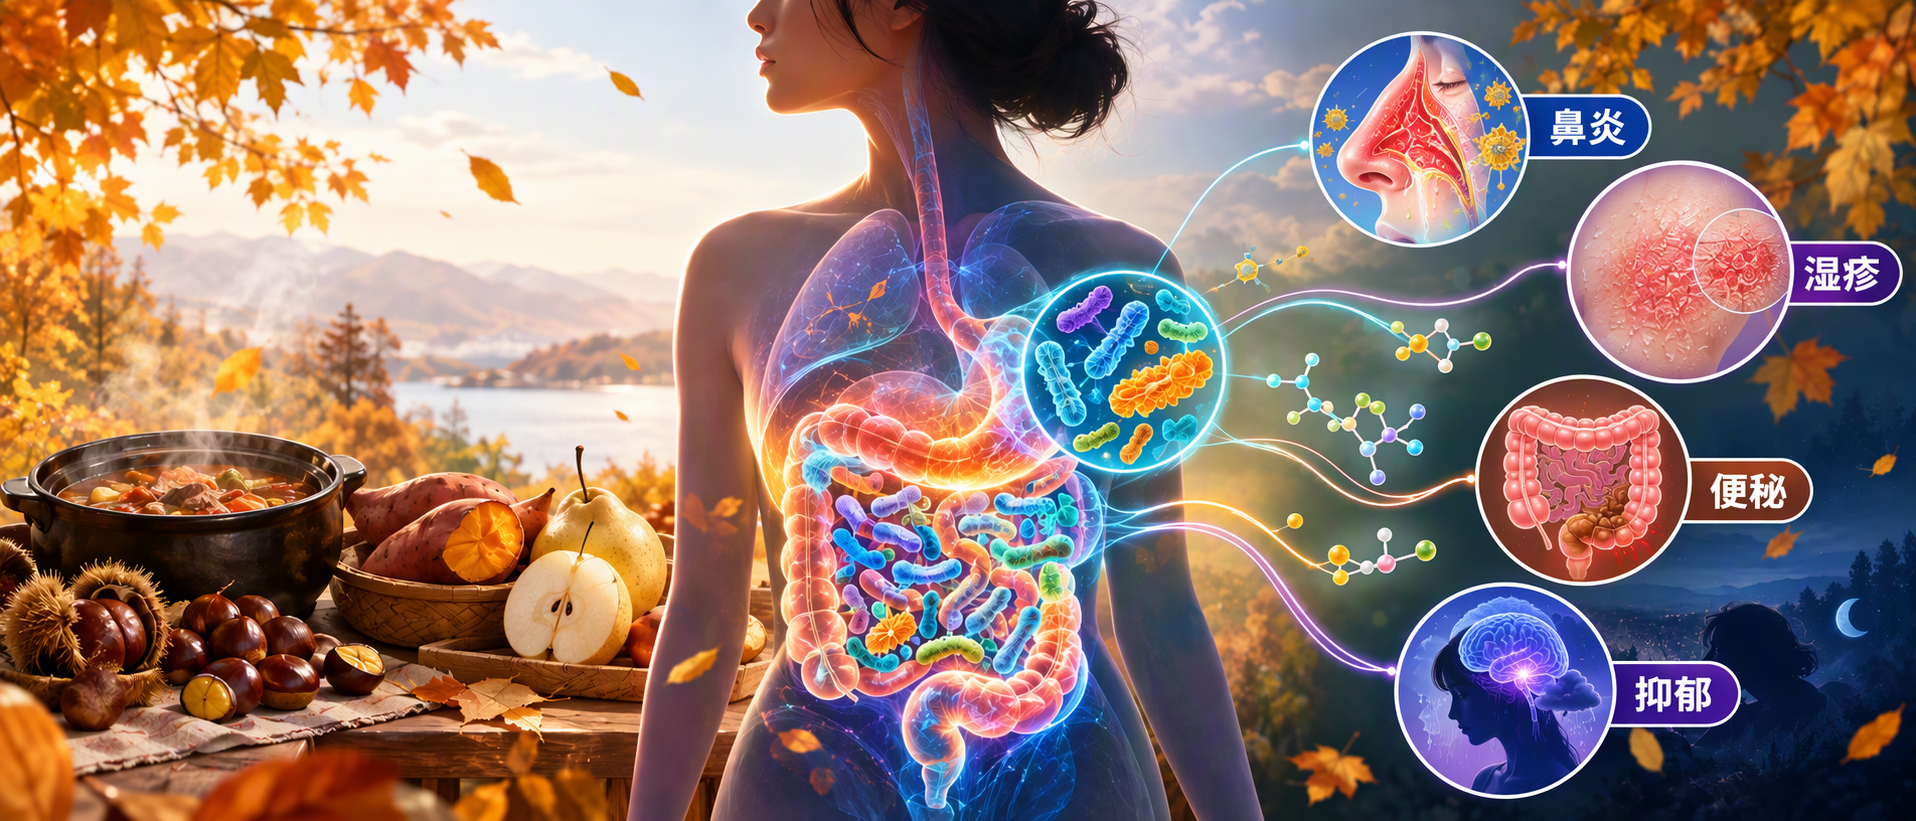
肠道不仅消化食物,更通过短链脂肪酸、胆汁酸与色氨酸代谢,遥控着我们的肺气道、皮肤屏障与大脑神经。为什么秋天肠道一“变阵”,鼻炎、湿疹、便秘与抑郁便组团来袭?我们又该如何顺应菌群节律,来精准贴秋膘?
本文将结合最新微生态研究与临床证据,带你从微观世界看懂身体的秋季警报,找到一套标本兼顾的秋季健康新方案。
过敏性鼻炎 / 结膜炎:短链脂肪酸减少,削弱过敏免疫调节
秋季部分地区的蒿属、豚草等杂草花粉较多,吸入后可诱发IgE介导的过敏反应,使肥大细胞释放组胺等炎症介质,导致鼻痒、喷嚏、流涕、鼻塞、眼痒、充血、流泪等症状。冷空气及干燥环境还可能加重鼻黏膜刺激,结膜炎患者会加重眼部不适。
肠道菌群可能通过调节性T细胞(Treg)、Th2型免疫反应及短链脂肪酸代谢参与过敏免疫调节。
过敏性鼻炎
Watts等研究发现,过敏性鼻炎患者肠道中副拟杆菌属(Parabacteroides)增加、草酸杆菌属(Oxalobacter)减少。另一项研究则发现,患者肠道中布劳特氏菌属(Blautia)、多雷菌属(Dorea)及Subdoligranulum等减少,伴随粪便短链脂肪酸水平降低。
丁酸等短链脂肪酸能够维持肠道屏障功能,并促进Treg介导的免疫调节。当相关代谢功能下降时,机体对过敏炎症的抑制作用可能减弱,使Th2型免疫反应更容易放大,促进IL-4、IL-5及IgE相关反应,进而加重鼻黏膜炎症。
肠道微生物群失调如何影响过敏性鼻炎
Li J, et al., Eur Arch Otorhinolaryngol. 2022
扩展阅读:
肠道微生物群在过敏性鼻炎中的作用
过敏性结膜炎
Liu等利用大规模人群遗传数据进行孟德尔随机化分析,发现霍尔德曼菌属(Holdemanella)、链杆菌属(Catenibacterium)、瘤胃球菌科UCG-002组(Ruminococcaceae UCG-002)的遗传预测丰度较高,与较低的过敏性结膜炎风险相关。
2024年另一项研究发现,克里斯滕森菌科R-7组(Christensenellaceae R-7 group)及毛螺菌科FCS020组(LachnospiraceaeFCS020 group)也呈现提示性的保护关联。
部分瘤胃球菌科微生物参与胆汁酸转化,其代谢产物可通过FXR、TGR5等受体影响免疫调节;肠道微生物产生的丁酸等短链脂肪酸,也可能促进Treg功能,抑制过度活跃的Th2型免疫反应。 当免疫耐受能力下降时,IL-4、IL-13等炎症信号可能增强IgE相关反应,促进眼部过敏炎症。
支气管哮喘:肠道丁酸不足,放大IgE介导的气道炎症
秋季是部分地区儿童哮喘急性发作的高峰期,尤其在开学后更为明显。学校人员聚集增加了鼻病毒等呼吸道病毒的传播机会,病毒感染可损伤气道上皮,激活炎症反应,使原本处于高反应状态的支气管更容易收缩,并伴随黏液分泌增多,引起喘息、胸闷、夜间咳嗽,严重时甚至出现呼吸困难。花粉暴露和气温变化也可能进一步增加发作风险。
肠道菌群可能通过“肠-肺轴”参与气道免疫调节。Chen等对66名哮喘患儿和35名健康儿童进行比较,发现哮喘患儿肠道中拟杆菌属(Bacteroides)增加,粪杆菌属(Faecalibacterium)及韦荣球菌属(Veillonella)减少,同时伴随IgE、IL-4、IL-5、IL-13水平升高及Th1/Th2免疫失衡。
涉及哮喘的简化细胞机制及其与微生物的相关性
2026年Miyachi等对300名儿童开展肠道宏基因组分析,发现普通拟杆菌(Bacteroides vulgatus)、Bacteroides uniformis等与肺功能指标存在关联,而溴瘤胃球菌(Ruminococcus bromii)和Alistipes indistinctus在特定遗传风险儿童中表现出提示性的保护关联。
研究发现,哮喘患者粪便及血浆丁酸水平降低。进一步的机制实验表明,丁酸可通过GPR43受体抑制p38 MAPK/NF-κB信号,限制Tfh13细胞活性,从而减少过敏原特异性IgE产生及气道炎症。
扩展阅读:
「哮喘」最新研究已逐步渗透到更精细层面
特应性皮炎与湿疹:秋燥加重皮肤屏障损伤
秋季空气湿度下降,皮肤水分流失增加,容易使特应性皮炎患者出现干燥、红斑、脱屑、剧烈瘙痒。特应性皮炎是常见的湿疹性疾病之一,其核心问题不仅是皮肤缺水,还包括皮肤屏障功能缺陷及免疫炎症异常。屏障受损后,外界刺激物更容易进入皮肤,形成“瘙痒—搔抓—屏障进一步受损”的恶性循环。
宏基因组分析发现,特应性皮炎患者肠道中部分瘤胃球菌科(Ruminococcaceae)、阿克曼菌科(Akkermansiaceae)细菌减少,同时伴随脂肪酸、维生素及氨基酸相关代谢通路改变。
丁酸等短链脂肪酸能够促进Treg功能,帮助维持免疫耐受;当相关代谢功能异常时,免疫调节能力可能受到影响。过度活跃的Th2型免疫反应可产生IL-4、IL-13等炎症因子,抑制丝聚蛋白(Filaggrin)等皮肤屏障蛋白的表达,使皮肤更容易失水、受到刺激并产生瘙痒。
荨麻疹:肺炎克雷伯菌增多,肠道屏障受损,加重肥大细胞炎症
荨麻疹主要表现为突然出现的风团、皮肤瘙痒,部分患者还可伴随血管性水肿。其核心机制是肥大细胞活化并释放组胺等炎症介质,导致皮肤血管扩张、通透性增加。秋季气温下降,冷空气可能诱发寒冷诱导性荨麻疹,但与病因复杂、反复发作的慢性自发性荨麻疹(CSU)并不相同。
近年来研究发现,肠道菌群可能通过影响肠道屏障和微生物代谢产物,参与慢性自发性荨麻疹的炎症调节。
2024年Zhu等在《Nature Communications》发表研究,发现慢性自发性荨麻疹患者肠道中肺炎克雷伯菌增加,而人源罗斯氏菌(Roseburia hominis)等短链脂肪酸产生菌减少,同时伴随血液短链脂肪酸水平降低、脂多糖(LPS)水平升高。其中,肺炎克雷伯菌丰度与疾病活动程度相关。
2025年Podder等的人体研究同样发现,患者肠道中产短链脂肪酸菌减少、条件致病菌增多,部分菌群变化与荨麻疹活动程度及疾病控制情况相关。
慢性荨麻疹中肠道菌群的改变及影响
Cai R,et al.Gut Microbes.2024
短链脂肪酸减少会削弱肠道屏障的保护作用,使细菌来源的脂多糖更容易进入血液循环。 脂多糖可通过TLR4等炎症信号增强肥大细胞的活化反应,促进组胺、IL-4和IL-13等炎症介质释放,进而加重皮肤风团及瘙痒。
相关阅读:
“免疫皮肤病”——慢性荨麻疹的发病、症状以及治疗改善新视角
银屑病(牛皮癣):产丁酸菌减少,通过IL-23/Th17通路加重皮肤炎症
银屑病(俗称牛皮癣)是一种慢性免疫介导的炎症性皮肤病,典型表现为边界清晰的红色斑块,表面覆盖银白色鳞屑。部分患者在秋冬季因日照减少、皮肤干燥及感染等因素出现症状加重。其核心病理机制是IL-23/Th17免疫通路过度活跃,促进IL-17、IL-22等炎症因子释放,引起角质形成细胞异常增殖和皮肤炎症。
编辑
Liu S, et al., Cell Communication and Signaling, 2024
Xiao等对70名银屑病及银屑病关节炎患者和25名健康对照进行宏基因组分析,发现患者肠道中直肠真杆菌(Eubacterium rectale)及部分阿利斯特菌属(Alistipes)菌种减少,其中银屑病关节炎患者的直肠真杆菌下降更明显。这些菌群与碳水化合物发酵及短链脂肪酸代谢有关。
2025年另一项纳入128人的病例对照研究发现,普氏粪杆菌(Prevotella copri)及埃格特菌科(Eggerthellaceae)与银屑病存在风险关联,而厚壁菌门中的Anaerostipes hadrus、Blautia wexlerae等表现出潜在保护关联。
编辑
丁酸等短链脂肪酸具有维持肠道屏障、促进Treg细胞功能及调节炎症反应的作用。 当相关代谢功能下降时,肠道屏障及免疫调节可能受到影响,促使IL-23/Th17炎症通路更加活跃。Th17细胞分泌的IL-17、IL-22可进一步刺激角质形成细胞增殖,促进炎症细胞募集,加重皮肤红斑和鳞屑。
相关阅读:
牛皮癣看似皮肤病,实则关系到肠道
牛皮癣发作和复发的触发因素
便秘:产丁酸菌减少、胆汁酸代谢异常,影响肠道蠕动
秋季天气转凉后,部分人饮水量和运动量减少,加上膳食纤维摄入不足,容易出现大便干硬、排便费力及排便次数减少等问题。
中医常将这类表现与“秋燥伤津、肠道失润”联系起来。现代医学则认为,便秘主要与结肠传输减慢、粪便含水量减少及排便协调功能异常有关。
近年来研究发现,肠道菌群可能通过短链脂肪酸、胆汁酸及肠神经信号参与肠道动力调节。
Han等对24名慢传输型便秘患者和24名健康对照进行宏基因组分析,发现患者肠道中长双歧杆菌、Gordonibacter pamelaeae增加,而Roseburia intestinalis和伴生粪球菌(Coprococcus comes)减少,同时伴随胆汁酸和胆固醇代谢相关功能变化。
2026年一项纳入101人的研究也发现,慢性功能性便秘患者肠道中粪杆菌属(Faecalibacterium)、罗斯氏菌属(Roseburia)减少,而克雷伯菌属(Klebsiella)增加。
2025年另一项多组学研究则观察到,功能性便秘患者的鹅去氧胆酸水平降低。
饮食、微生物群和结肠生理在便秘发病机制中的相互作用
编辑
涉及两条途径:
一是罗斯氏菌等微生物参与丁酸生成,影响结肠上皮及肠道环境;
二是肠道菌群通过胆汁酸转化,影响TGR5受体及肠嗜铬细胞的5-羟色胺(5-HT)释放。
5-羟色胺能够参与肠神经反射和肠道蠕动调节,因此胆汁酸代谢异常可能影响结肠推进运动,使排便更加困难。
相关阅读:
排便困难?便秘反复?不要忽视肠道菌群
肠易激综合征:菌群影响胆汁酸代谢,增强内脏敏感性
肠易激综合征(IBS)是一种常见的肠-脑互动障碍,主要表现为反复腹痛、腹胀,伴随腹泻、便秘或排便习惯改变。
秋季开学、工作节奏调整及饮食变化,可能通过精神压力、自主神经和肠道动力变化,使部分患者症状加重。其重要病理特征是内脏敏感性增高,即正常程度的肠道扩张或刺激也可能引起明显腹痛。
近年来研究发现,肠道菌群可能通过胆汁酸代谢、肠道屏障及神经免疫信号参与这一过程。
2024年Li等整合14个肠易激综合征菌群发现队列及多个干预队列,共9204份数据集,发现患者肠道中存在两类相对富集的微生物群,其中一类为通常存在于口腔的兼性厌氧菌,包括非典型韦荣球菌(Veillonella atypica)、殊异韦荣球菌(Veillonella dispar)及小韦荣球菌(Veillonella parvula)等,提示口腔来源微生物在肠道中的异常定植可能与疾病有关。
Zhan等对25名腹泻型肠易激综合征(IBS-D)患者和15名健康人进行分析,发现患者肠道中卵形拟杆菌(Bacteroides ovatus)减少,同时粪便总胆汁酸、初级胆汁酸及鹅去氧胆酸水平升高。
编辑
卵形拟杆菌参与胆盐水解酶(BSH)相关代谢,其减少可能影响胆汁酸转化,导致初级胆汁酸异常积累。 鹅去氧胆酸等胆汁酸可激活TGR5受体,影响肠道黏膜屏障和感觉神经信号,增强内脏敏感性,使患者更容易出现腹痛、腹泻等症状。
胃食管反流:肠道细菌过度生长与食管微生态异常,可能影响黏膜屏障
天气转凉后,部分人偏爱火锅、油腻食物和夜宵,若进食过多或餐后立即平卧,可能增加胃食管反流的发生机会。胃食管反流病(GERD)主要与食管下括约肌抗反流功能异常、胃内容物反流及食管黏膜屏障受损有关,典型症状为反酸、烧心,部分患者还可出现胸骨后不适。
近年来研究发现,胃食管反流与小肠细菌过度生长(SIBO)及肠道微生态变化可能存在联系。
Wang等对394名消化科患者进行研究,发现胃食管反流与小肠细菌过度生长存在显著关联,尤其与甲烷呼气试验阳性有关。其中24名接受粪便菌群测序的患者显示,合并胃食管反流和SIBO者存在普通拟杆菌(Bacteroides uniformis)和粪拟杆菌(Bacteroides stercoris)等菌群特征。
食管局部微生态与反流症状的机制联系也很紧密。2024年研究发现,胃食管反流症状患者的食管菌群中革兰阴性菌比例升高,尤其是假单胞菌属(Pseudomonas)相对富集,同时伴随TLR2表达升高、紧密连接蛋白Claudin-1减少及上皮细胞间隙扩大。
局部革兰阴性菌来源的脂多糖(LPS)可促进TLR2及IL-6相关炎症信号,抑制Claudin-1表达,削弱食管上皮屏障。 当反流物接触黏膜时,受损的屏障可能使感觉神经更容易受到酸及其他刺激物影响,从而加重烧心、反酸相关不适。
抑郁:产丁酸菌减少、色氨酸代谢异常,影响神经炎症与情绪调节
秋季白昼逐渐缩短、日照减少,部分人可能出现情绪低落、兴趣减退、疲劳、嗜睡及食欲变化。具有反复秋冬季发作特点的抑郁症状,可能属于季节性情感障碍。其发生与生物钟紊乱、褪黑素节律及血清素相关信号变化有关。
近年来研究发现,肠道菌群可能通过“肠-脑轴”参与情绪调节,尤其涉及短链脂肪酸、色氨酸代谢及神经免疫信号。
一项荟萃分析,纳入44项研究、共4883人,发现抑郁症患者肠道中丁酸球菌属(Butyricicoccus)、粪球菌属(Coprococcus)、粪杆菌属(Faecalibacterium)等减少,而埃格特菌属(Eggerthella)、肠球菌属(Enterococcus)、链球菌属(Streptococcus)等增加。
一项研究对400人进行多组学分析,发现抑郁相关人群肠道中氨基酸球菌属(Acidaminococcus)、克里斯滕森菌科R-7组(Christensenellaceae R-7 group)、巨球菌属(Megasphaera)等存在差异,同时伴随15种粪便代谢物变化。
几种心理障碍中的肠道菌群失调
编辑
Borrego-Ruiz A,et al. Prog Neuropsychopharmacol Biol Psychiatry.2023
涉及的主要途径:
一是产丁酸相关菌群减少,可能削弱肠道屏障及免疫调节,使炎症信号更容易影响神经系统;
二是肠道菌群可能通过炎症及代谢信号,影响色氨酸向犬尿氨酸(Kynurenine)等产物的转化。犬尿氨酸通路中的部分代谢物与神经炎症、谷氨酸信号及神经细胞功能有关。
Zhang等对86名抑郁症患者及120名健康人进行研究,发现布劳特氏菌属(Blautia)、Alloprevotella及巨单胞菌属(Megamonas)与犬尿氨酸/色氨酸比值呈正相关,提示菌群变化可能与色氨酸代谢及炎症调节有关。
扩展阅读:
中医药治疗抑郁症——来自肠道菌群的解释
抑郁症与肠道微生物群有何关联
焦虑:菌群与皮质醇、GABA代谢异常,参与应激反应
秋季开学、工作节奏调整及生活压力增加,可能使部分人出现紧张不安、心悸、注意力下降、失眠等症状。但焦虑障碍并没有明确的秋季高发规律,其发生与遗传、心理压力、神经递质及应激系统调节等多种因素有关。
肠道菌群可能通过肠-脑轴,与下丘脑—垂体—肾上腺(HPA)轴、自主神经系统及神经活性代谢物相互作用,参与机体的压力反应。
Li等对60名广泛性焦虑障碍患者和30名健康人进行多组学分析,发现患者肠道中大肠杆菌—志贺菌属(Escherichia-Shigella)增加,而罗斯氏菌属(Roseburia)、双歧杆菌属及部分普雷沃氏菌属减少。
同时,患者血浆中皮质醇、谷氨酸水平升高,γ-氨基丁酸(GABA)及血清素水平降低,提示肠道微生态变化可能与应激激素及神经活性物质代谢异常相关。
编辑
2025年另一项纳入24篇研究的系统综述发现,焦虑人群肠道中毛螺菌属(Lachnospira)、粪杆菌属(Faecalibacterium)、丁酸球菌属(Butyricicoccus)等相对减少,而肠杆菌科(Enterobacteriaceae)及梭杆菌属(Fusobacterium)相关菌群增多,但不同研究结果并不完全一致。
肠道屏障及微生物代谢功能异常可能改变炎症信号,影响HPA轴对压力的反应,使皮质醇分泌和自主神经活动发生变化。 同时,GABA和谷氨酸分别参与抑制性和兴奋性神经信号调节,其代谢异常可能与焦虑相关的神经兴奋性变化存在联系。
扩展阅读:
焦虑时代,肠道为何可能成为情绪调节的新入口
你的焦虑可能与食品添加剂有关,警惕食品添加剂引起的微生物群变化
失眠:粪杆菌和毛螺菌减少,微生物代谢影响睡眠调节
秋季白昼缩短、日照时间变化,可能影响人体昼夜节律。对于作息不规律或长期处于压力状态的人群,生物钟与睡眠需求之间的协调可能受到影响,出现入睡困难、夜间易醒、凌晨醒、睡眠浅和白天疲惫等症状。
睡眠不仅受褪黑素、腺苷及神经系统调节,还可能与肠道微生物产生的代谢物有关。
一项荟萃分析纳入14项研究、共9036人,发现失眠患者肠道中粪杆菌属、毛螺菌属减少,而布劳特氏菌属(Blautia)及Eubacterium hallii增加,同时伴随部分炎症及代谢指标变化。
Lin等多组学研究,发现毛螺菌属与血清腺苷水平及总睡眠时间呈正相关,而粪球菌属(Coprococcus)与血清苯酚、苯酚硫酸酯水平呈负相关。其中,苯酚及苯酚硫酸酯水平越高,部分失眠严重程度评分也越高。
影响睡眠的微生物群-肠道-大脑轴交流模式
编辑
Sen P, et al.,Trends Mol Med. 2021
腺苷是参与睡眠压力调节的重要信号分子;色氨酸代谢与褪黑素生成、昼夜节律也存在联系。肠道菌群可能通过影响代谢产物、免疫炎症及应激信号,间接参与睡眠调节。
睡眠节律紊乱也可能反过来改变肠道菌群组成及代谢功能,形成双向影响。
不过,血液腺苷水平与睡眠时间相关,并不能证明肠道菌群通过改变脑内腺苷直接导致失眠。2026年另一项整合468人的跨队列分析还观察到失眠者多样性升高,提示不同人群的菌群特征并不完全一致。
扩展阅读:
深度解析 | 睡眠健康与肠道健康之间的双向联系
肠道菌群与睡眠:双向调节
睡不着?别只怪压力!你的肠道菌群可能在作乱,中草药来修复
1. 滋阴润燥、以粮养菌:激活短链脂肪酸防线
针对问题
过敏性鼻炎、哮喘、特应性皮炎/湿疹、便秘。
菌群机制
秋季燥邪伤津,易致产短链脂肪酸(SCFA)菌群(如罗斯氏菌、伴生粪球菌、普拉梭菌)相对不足,削弱肠黏膜与皮肤气道屏障,并降低Treg免疫耐受,诱发Th2/Th17过度炎症。
当季饮食底物
可溶性膳食纤维与抗性淀粉:秋季根茎与谷物成熟,多选用山药、莲藕、百合、银耳、南瓜、芋头及燕麦、杂粮粥。不仅滋阴润肺,更为产丁酸菌提供丰富发酵底物,促进丁酸生成,修复“肠-肺”、“肠-皮”黏膜轴。
坚果润燥
适量补充核桃、黑芝麻、松子,富含不饱和脂肪酸与植物多酚,促进胆汁酸代谢协调,润滑肠道改善便秘。
2. 食疗药膳与本草配伍:精准重塑微生态平衡
针对问题
过敏体质、虚弱湿热、消化不良。
推荐药膳
沙参麦冬百合银耳羹:滋阴清肺、增液润肠,为双歧杆菌等益生菌提供黏多糖底物。
四神汤(山药、莲子、芡实、茯苓)
健脾渗湿,利于改善肠壁微循环,抑制革兰氏阴性条件致病菌及脂多糖(LPS)移位。
适宜中草药代茶饮
太子参、黄芪搭配麦冬,益气养阴固表;咽干鼻痒者可加桔梗、辛夷、甘草;肠燥者可泡服决明子配郁李仁。
3. 调控“肠-脑-轴”与光照节律:平复秋冬情绪与失眠
针对问题
秋季抑郁(季节性情感障碍)、焦虑、入睡困难。
菌群机制
日照缩短扰乱褪黑素与血清素分泌;产丁酸菌减少易促使色氨酸转向神经毒性的犬尿氨酸通路,诱发神经低度炎症。
干预方式
营养补充:食用香蕉、小米、豆类、禽肉等富含色氨酸与B族维生素的食物,促进脑-肠5-HT合成。
采光与作息
遵循“早卧早起,与鸡俱兴”。早晨安排30分钟户外快走,充足晨光能同步生物钟,间接稳定肠道微生物昼夜节律;晚间避免蓝光,睡前可用温水配合酸枣仁、百合茶安神。
4. 动静适度,护温养气:顺应秋季收敛节律
针对问题
内脏敏感性增高、肠易激综合征(IBS)、体虚乏力。
起居与运动
秋主收敛,运动宜选择八段锦、太极、慢跑或瑜伽,避免大汗淋漓耗伤津液;注意腹部及颈部保暖,防止冷刺激诱发肠道痉挛与肥大细胞组胺释放。
总结
秋季养生核心在于顺应时序,以秋收之物(根茎、多糖、坚果)喂养有益菌群,通过提升短链脂肪酸水平稳固屏障、平抑过敏、滋润肠道、舒缓神经,实现从肠道微生态到全身内外兼治的健康平衡。
注:这篇文章仅用于提供信息参考,提供的任何信息都不应被视为医疗建议。
主要参考文献
Watts AM, West NP, Zhang P, Smith PK, Cripps AW, Cox AJ. The Gut Microbiome of Adults with Allergic Rhinitis Is Characterised by Reduced Diversity and an Altered Abundance of Key Microbial Taxa Compared to Controls. Int Arch Allergy Immunol. 2021;182(2):94-105.
Liu K, Cai Y, Song K, Yuan R, Zou J. Clarifying the effect of gut microbiota on allergic conjunctivitis risk is instrumental for predictive, preventive, and personalized medicine: a Mendelian randomization analysis. EPMA J. 2023 May 22;14(2):235-248.
Miyachi H, Shibata R, Javornik Cregeen SJ, Surathu A, Sijaric M, Espinola JA, Sullivan AF, Mansbach JM, Camargo CA Jr, Zhu Z. Interactions between host genetics and gut microbiome influence susceptibility to childhood asthma and lung function. J Allergy Clin Immunol. 2026 Apr;157(4):868-878.
Díez-Madueño K, Montero I, Fernández-Gosende M, Martínez-Álvarez N, Hidalgo-Cantabrana C, de la Cueva Dobao P, Coto-Segura P. Compositional and Functional Profile of Gut Microbiota in a Cohort of Adult Spanish Patients with Atopic Dermatitis Using Metagenomics: A Cross-Sectional Study. Dermatitis. 2025 Jul-Aug;36(4):358-364.
Zhu L, Jian X, Zhou B, Liu R, Muñoz M, Sun W, Xie L, Chen X, Peng C, Maurer M, Li J. Gut microbiota facilitate chronic spontaneous urticaria. Nat Commun. 2024 Jan 2;15(1):112.
Podder I, Pesqué D, Carrón N, González Torres PI, Pujol RM, Giménez-Arnau AM. Gut microbial alteration in chronic spontaneous urticaria unresponsive to second generation antihistamines and its correlation with disease characteristics- a cross-sectional case-control study. Clin Transl Allergy. 2025 Jan;15(1):e70027.
Xiao Y, Wang Y, Tong B, Gu Y, Zhou X, Zhu N, Xu X, Yin X, Kou Y, Tan Y, Wang J, Li W. Eubacterium rectale is a potential marker of altered gut microbiota in psoriasis and psoriatic arthritis. Microbiol Spectr. 2024 Apr 2;12(4):e0115423.
Han K, Kuo B, Khalili H, Staller K. Metagenomics Analysis Reveals Unique Gut Microbiota Signature of Slow-Transit Constipation. Clin Transl Gastroenterol. 2024 Oct 1;15(10):e1.
Li J, Ghosh TS, Arendt E, Shanahan F, O’Toole PW. Cross-Cohort Gut Microbiome Signatures of Irritable Bowel Syndrome Presentation and Treatment. Adv Sci (Weinh). 2024 Nov;11(41):e2308313.
Zhan K, Wu H, Xu Y, Rao K, Zheng H, Qin S, Yang Y, Jia R, Chen W, Huang S. The function of the gut microbiota-bile acid-TGR5 axis in diarrhea-predominant irritable bowel syndrome. mSystems. 2024 Mar 19;9(3):e0129923.
Wang ZT, Tan WT, Huang JL, Zhang PF, Li Q, Wang MM, Meng MM, Su H, Guo CM, Liu H. Correlation Between Gastroesophageal Reflux Disease and Small Intestinal Bacterial Overgrowth: Analysis of Intestinal Microbiome and Metabolic Characteristics. J Inflamm Res. 2025 Jan 4;18:33-51.
Zhang Q, Zhao W, Yun Y, Ma T, An H, Fan N, Wang J, Wang Z, Yang F. Multiomics analysis reveals aberrant tryptophan-kynurenine metabolism and immunity linked gut microbiota with cognitive impairment in major depressive disorder. J Affect Disord. 2025 Mar 15;373:273-283.
Li Y, Dai J, Wang M, Yan C, Xiu M, Qu M. Alterations in gut microbiota and plasma metabolites in patients with generalized anxiety disorder: a multi-omics study. Int J Neurosci. 2026 Mar;136(3):268-285.
Lin W, Yang Y, Zhu Y, Pan R, Liu C, Pan J. Linking Gut Microbiota, Oral Microbiota, and Serum Metabolites in Insomnia Disorder: A Preliminary Study. Nat Sci Sleep. 2024 Dec 7;16:1959-1972.
谷禾健康
AI+微生物海量数据
人体肠道栖息着数以万亿计的微生物,它们携带的基因总数远超人类自身。这些微生物参与食物成分的分解与代谢,调节免疫功能,通过“肠-脑轴”与大脑对话,甚至影响功能性补充剂或药物在体内的代谢过程、作用效果与不良反应风险,是连接饮食、营养干预与人体健康的重要纽带。
然而长期以来,这座信息“金矿”始终难以被真正开采:测序技术让我们能够读出海量数据,却难以读懂它们——高维、稀疏、成分性、个体差异巨大,使得传统统计甚至机器学习等方法在这些数据面前越来越显得力不从心和巨大局限性。
例如,样本采集与测序流程缺乏统一标准造成的批次效应、不同人群与地域之间的显著异质性、模型“黑箱”带来的可解释性难题、一个在单一队列上表现出色的模型,换到另一个人群中往往会明显失效;一个预测准确的算法,如果不能给出生物学上合理的解释,也难以获得临床医生的信任。
人工智能(AI) 的到来正在改写这一局面。从随机森林到深度神经网络,再到借鉴大语言模型思路、学习微生物“语言”的基础模型,AI 首次让我们有能力在百万量级的数据中捕捉菌群、代谢与宿主之间复杂的非线性关联,把“哪些菌多了、哪些菌少了”的描述,升级为:
未来面临什么风险、原因何在、如何干预?
哪些微生物及其代谢产物,亦或蛋白层面真正驱动了疾病的发生与发展?
它们通过怎样的分子通路与宿主免疫、代谢和神经系统对话?
能否针对个体的菌群特征,设计精准的饮食、益生菌或粪菌移植干预方案?
本文以《Cell Systems》(2026) 的权威综述为主线,结合《Gut》、《Current Research in Biotechnology》与微生物组-AI 疾病预测系统综述的最新证据,回答业界最关心的五个问题:
肠道微生物组数据难在哪里?
分析方法如何从传统统计演进到基础模型?
AI 取得突破需要跨过哪些数据门槛?
它能否输出多组学、可解释的指标?
全球研究与检测正如何应用 AI?
肠道微生物组下一个十年的竞争,不在测序成本,而在数据规模、数据质量与 AI 能力的综合较量。谷禾健康依托数百万例规模、在统一标准下积累的微生物组、代谢组、蛋白组与膳食调查配对数据,已跨过构建微生物组 AI 基础模型的“平台级”门槛。
肠道菌群检测正从一份“菌群清单”,跃迁为可预测、可解释、可干预的健康决策书,成为连接个人健康管理、临床医学、精准营养与新药研发的关键基础设施。
肠道微生物组被称为人体的”第二基因组”。大量研究已证实,肠道菌群失衡与炎症性肠病、结直肠癌、2型糖尿病、肥胖、代谢相关脂肪性肝病、慢性肾脏病、心血管疾病、自身免疫病乃至抑郁、自闭症、帕金森病等神经精神各类疾病密切相关。
然而,从“关联”走向”应用”始终面临一道鸿沟。《Current Research in Biotechnology》的综述明确指出,肠道菌群数据通常呈现噪声大、稀疏、高维、成分性复杂和异质性强的特征。
而多数 AI 算法恰恰”渴求大量干净且统一的数据”;来自不同来源、平台和方法的数据会引入偏倚与混杂变量。而即使宏基因组数据的成分性、高维性和稀疏性,叠加微生物组研究普遍样本量偏小的现实,加剧了维度bug,限制了传统统计方法的有效性。
换言之,肠道微生物组领域真正的瓶颈,已不再是能否测得出来,而是”能否算得明白、用得上”。这正是 AI 介入的根本逻辑,也是具备大规模、标准化、多组学数据积累的机构在这一轮产业变革中占据先机的根本原因。
人工智能在微生物学中的八大应用潜力方向
Cell Systems 17, February 18, 2026
物种分类谱分析(Taxonomic profiling)
功能注释与预测(Functional annotation & prediction)
微生物组-X 互作(Microbiome-X interactions)
微生物生态(Microbial ecology)
代谢建模(Metabolic modeling)
精准营养(Precision nutrition)
临床微生物学(Clinical microbiology)
预防与治疗(Prevention & Therapeutics)
主流检测技术与数据形态
目前肠道微生物组检测主要依托以下几类技术:
编辑
数据的五大本质特征
1)高维性(High dimensionality)
一份宏基因组样本可产生数千个物种、数百万个基因特征,而单个研究的样本量常仅数十到数百例,”特征数远大于样本数“(p ≫ n)是常态。
2)稀疏性(Sparsity)
丰度表中大量为零值,其中既有真实缺失,也有测序深度不足造成的技术性零值,二者难以区分。
3)成分性(Compositionality)
测序得到的是相对丰度,总和受限于测序深度,一个菌的”增加”可能仅是其他菌减少的数学结果,直接套用常规相关分析易产生伪相关。
4)异质性与批次效应
地域、饮食、年龄、用药(尤其抗生素、PPI、二甲双胍)、取样方式、DNA 提取试剂盒、测序平台均会显著影响结果。《Gut》综述将”批次效应“与”区域效应“列为数据预处理的首要问题。
5)动态性与个体特异性
肠道菌群随饮食、昼夜节律、疾病进程持续变化,横断面数据目前还难以支持因果推断。
编辑
这五大特征共同决定了:肠道微生物组数据的价值释放,高度依赖大样本、标准化流程与能够处理非线性、高维、多模态数据的算法。
编辑
doi:10.1136/gutjnl-2025-335946
第一阶段:传统统计与生物信息学(描述与差异)
早期分析以 α/β 多样性、PCA/PCoA 降维、层次聚类、差异丰度检验(如 LEfSe、DESeq2、ANCOM)和相关网络为核心。
这类方法的优点是透明、机制可解释、适合假设检验,Gut 综述也承认,在需要机制透明度或假设检验的场景中,传统方法依然具有价值。
其局限在于:多为单变量或线性假设;难以捕捉菌-菌、菌-宿主间的非线性与高阶互作;多重检验校正后统计功效显著下降;难以整合多组学。
第二阶段:经典机器学习(预测与特征筛选)
以随机森林(RF)、支持向量机(SVM)、LASSO/弹性网络回归、逻辑回归、XGBoost 为代表的监督学习方法被广泛用于:
疾病分类:区分 CRC 患者与无瘤人群、IBD 亚型、膜性肾病与微小病变肾病等;
结局预测:预测 2 型糖尿病与前驱糖尿病、肿瘤免疫治疗应答、胰岛素抵抗人群的脂肪肝风险、粪菌移植(FMT)疗效;
个体化代谢反应:基于菌群特征预测餐后甘油三酯上升、血糖曲线下面积和 C 肽水平。
Current Research in Biotechnology 的汇总表显示,随机森林是目前应用最广泛的方法之一,可提升分析速度、筛选特征并评估其质量。同时,无监督学习(聚类、降维)被用于菌群分型(如”肠型”)和人群分层。
经典机器学习的局限同样明确:对特征工程依赖较重;在小样本上易过拟合;对早期病变(如早期 CRC)敏感度不足;跨队列泛化能力有限。
第三阶段:深度学习(表征学习与非线性建模)
深度学习的核心进步在于从“人工设计特征”转向“自动学习表征”:
自编码器家族(浅层/深层自编码器、变分自编码器 VAE、卷积自编码器):利用这些方法获得稳健的低维嵌入后,可在五个数据集上实现精确的疾病预测,并优于传统方法;
卷积神经网络(CNN):将菌群数据按系统发育树结构映射为“图像”,利用分类学层级信息;
循环神经网络(RNN)/长短期记忆网络(LSTM):处理纵向时间序列数据,捕捉菌群动态模式;
图神经网络(GNN):建模微生物共现网络与菌-代谢物-宿主相互作用网络;
注意力机制与 Transformer:在特征间建立长程依赖,同时提供天然的“注意力权重”解释。
第四阶段:预训练语言模型与基础模型(通用表征与迁移)
从 2000 年前的 One-Hot、TF-IDF 稀疏编码,到 2013-2014 年的 Word2Vec、GloVe 静态稠密嵌入,再到 2018 年后 ELMo、BERT 等上下文嵌入。
这一思想正被全面移植到微生物组:
将“物种”或“基因”视为“词”,将“样本”视为“句子”,通过大规模预训练学习微生物语言;
蛋白质语言模型用于微生物组蛋白空间的免比对分析(alignment-free);
基于大规模预训练的模型在下游小样本任务上通过迁移学习(transfer learning)实现高效微调。
《Gut》综述在结论中明确指出:“迁移学习和基于语言的预训练有望使 AI 模型更具数据效率、更具生物学根基”。这意味着,谁拥有足够大、足够多样、足够标准化的预训练数据,谁就具备了构建微生物组基础模型的关键先决条件。
基于人工智能的微生物组数据分析工作流
编辑
Zhou T, Zhao F. Gut 2026;75:1432–1446.
方法演进对照
编辑
必要条件
那么,AI 在肠道微生物组领域取得可靠进展需要同时满足以下条件:
1)足量且具代表性的数据
Current Research in Biotechnology 明确指出:“构建可靠输出的稳健机器学习(ML)框架,充足的数据集和强大的算力都是先决条件”。深度学习的主要障碍正是“标注数据稀少”以及“训练数据与真实样本(如临床数据)之间的显著差异”。
2)标准化的全流程质量控制
从采样、保存、提取、建库、测序到生信分析的一致性,直接决定数据能否被合并训练。Gut 综述将“不一致的预处理和缺乏标准化基准”列为可重复性下降的主因。
3)高质量的表型标注
监督学习的上限由标签质量决定。缺乏临床诊断、生化指标、饮食与用药记录的菌群数据,其建模价值大打折扣。研究亦提到,饮食作为重要混杂因素常被忽视。
4)独立队列验证
需要在不同地域、人群、时间的独立数据上验证,采用分层交叉验证应对类别不平衡,避免过于乐观的性能评估。
5)多组学配对数据
仅有物种丰度难以回答为什么,需要代谢组、蛋白组等功能层数据支撑机制解释。
6)算力与算法工程能力
包括超参数优化、正则化、早停、数据增强等防过拟合策略。
数据规模的“三级门槛”
基于现有研究和产业领域实践,可将 AI 应用的数据规模大致划分为三个层级:
◆ 研究级(10²~10³ 样本)
适合经典机器学习(ML)的探索性分类与标志物初筛,但过拟合风险高,结论常难以复现。系统综述和 Current Research in Biotechnology 汇总的大量研究均将“样本量小”列为首要局限。
◆ 转化级(10⁴~10⁵ 样本)
可支撑深度学习模型、跨人群泛化验证、疾病亚型分层,以及较稳健的人群参考区间构建。
◆ 平台级(10⁶ 样本及以上,且含多组学配对)
可支撑微生物组基础模型预训练、罕见表型挖掘、个体化纵向轨迹建模,形成难以复制的数据网络效应。
全球范围内,达到平台级、且兼具标准化流程与多组学配对的数据资源极为稀缺。这正是行业真正的门槛所在。
AI 相对于传统方法与经典机器学习的优势
1)捕捉非线性与高阶互作
AI 能够“捕捉非线性关系、整合多样化数据模态,揭示原本可能被隐藏的细微生物学模式”。菌群生态本身就是一个充满促进与抑制关系的复杂网络(微生物生态模块),线性模型天然难以刻画。
2)端到端表征学习,减少人为偏倚
深度模型自动从原始数据学习特征,降低对研究者先验的依赖。
3)原生的多模态融合能力
可在统一框架内融合菌群、代谢物、蛋白、临床与饮食数据。
4)时间序列与动态建模
RNN/LSTM/Transformer 可对纵向数据建模,实现趋势预警,而非单点快照。
5)规模效应与迁移学习
数据越多模型越强,预训练模型可迁移至小样本疾病,解决罕见病、新适应症样本不足的难题。
6)从预测走向设计
生成式 AI 已被用于抗菌肽设计、噬菌体-宿主匹配、益生菌筛选,实现从分析向创造的跃迁。
多组学整合的三种策略
Gut 综述将多组学整合归纳为三类:
直接数据合并:将不同组学特征拼接后统一建模;
间接数据合并:各组学先分别学习低维表征,再在隐空间融合;
模型融合:各组学独立建模后集成决策。
深度学习,尤其是多模态自编码器与图神经网络,使中间融合成为主流,能够显式建模“菌群-基因功能-代谢物-宿主蛋白-临床表型”的链条。
可解释 AI(XAI):打开黑箱
黑箱是 AI 进入临床的最大障碍之一。
Gut 综述指出,LIME、SHAP、DeepLIFT 和注意力机制等可解释 AI 技术“正被越来越多地采用,以增强可解释性,并使预测与生物学相关性保持一致”。
多尺度人工智能(AI)在微生物组数据挖掘中的应用
编辑
doi:10.1136/gutjnl-2025-335946
在实践层面,可解释 AI 能输出以下可落地的指标:
个体层面:每位受检者的风险评分由哪些菌、哪些代谢通路贡献,贡献方向与强度如何(SHAP 值);
人群层面:全局最重要的特征排序与交互效应;
机制层面:结合代谢建模,将关键菌映射到具体酶基因(如cutC/D)与代谢产物(如 TMA/TMAO);
干预层面:模拟改变饮食或补充特定菌株后,风险评分的预期变化(反事实解释)。
AI 不仅可以输出多组学指标,还能输出具有生物学含义、可被临床与用户理解的解释性因素——前提是模型设计时即以可解释性为目标,并以多组学数据作为机制锚点。
应用方向
1)物种分类谱分析
深度学习模型直接从测序读段中进行物种分类,提升低丰度物种与未培养微生物的识别能力,将序列信息(ATCG)转化为精确的群落组成图谱。
2)功能注释与预测
对质粒、生物合成基因簇(BGCs)、抗生素耐药基因(如万古霉素、大环内酯类耐药基因)以及病毒突变进行识别与功能预测。蛋白语言模型大幅扩展了“暗物质”蛋白的功能注释。
3)微生物组-X 互作
建模微生物组与宿主、药物、疾病之间的三角关系:预测药物被肠道菌代谢的可能性、菌群对药效与毒性的影响,以及菌群特征与疾病的关联。
4)微生物生态
推断微生物间促进与抑制的相互作用网络,预测群落稳定性与扰动后的恢复轨迹。
5)代谢建模
结合基因组尺度代谢模型(GEMs)与 AI,预测小分子代谢转化路径及代谢网络的补全(gap-filling)。
6)精准营养
整合宿主基因、菌群、代谢物(如短链脂肪酸)与生活方式数据,预测个体对食物的代谢反应,给出个性化膳食建议。
7)临床微生物学
从人体样本到病原识别、耐药预测再到临床诊断报告的全流程智能化。
8)预防与治疗
AI 辅助设计益生菌、噬菌体、抗生素、抗菌肽乃至疫苗,是当前最具突破性的前沿之一。
AI+ 大数据微生物组的应用潜力
编辑
Zhou T, Zhao F. Gut 2026;75:1432–1446
疾病预测:系统性证据
一项聚焦微生物组与 AI 疾病预测的系统综述比较了传统机器学习(ML)与深度学习(DL)方法,指出 AI 在识别疾病特异性微生物组模式、提高诊断准确性方面展现出应用潜力,涉及神经系统疾病、心血管疾病等多类慢性疾病。同时,该综述强调,现有研究的方法学异质性较高,亟需建立标准化分析流程,以提高研究结果的可比性与可重复性,推动临床转化。
谷禾健康利用 AI 构建的疾病预测模型,在检出率和敏感性方面在已验证的疾病预测任务中优于既往模型。尽管模型在不同疾病和人群中的适用性与泛化能力仍需持续验证,但这一进展标志着谷禾健康突破传统特征筛选与建模方法的局限,推动疾病预测从依赖有限标志物向整合多维菌群信息升级,为提升早期风险识别与精细化风险分层能力提供新的技术支撑。
Current Research in Biotechnology 的综述则以表格形式汇总了 AI 在 IBD、CRC、T2D、脂肪肝、肾病、移植物抗宿主病等领域的应用,并坦率列出小样本、未控制饮食混杂等局限。
全球趋势小结
综合来看,全球 AI-微生物组研究呈现四大趋势:
1)从微生物组学 + 代谢组的多组学升级;
2)从单一队列向多中心、跨地域数据联合建模,联邦学习成为在保护隐私前提下实现大规模协作的重要方案;
3)从预测模型向可解释、可干预模型演进;
4)从通用模型向基于预训练的领域基础模型发展。
共同的底层约束始终是:大规模、标准化、带高质量表型的多组学数据。
为什么是肠道-肝胆-肾脏轴?
人类代谢组数据库已收录超过 20 万种化合物;这些内源性与外源性代谢物或原样存在,或经人体酶代谢,或经宿主常驻细菌的酶代谢。肠道菌群产生前体物质,经门静脉进入肝脏进行转化(氧化、结合),最终由肾脏排泄——这是一条天然的“多器官-多组学”链条。
任何一个环节的异常,都会在循环代谢物谱上留下可测量的“指纹”。
IJMS(Mashima & Ishige, 2026)的综述还提出了一个对检测行业极具启发的观点:常规临床生化要求空腹采样,正是为了尽量减少饮食输入及其后续宿主与微生物代谢的影响;而现有技术已能检测纳摩尔级的外源性生物标志物。这意味着,饮食、菌群与宿主代谢的交互本身就是信息,而非噪声——只有同时掌握饮食、菌群和代谢数据,才能把“干扰”转化为“信号”。
关键疾病与生物标志物
1)代谢相关脂肪性肝病(MASLD/MASH)
MASLD 已成为全球最常见的慢性肝病,且越来越多患者进展为肝硬化和肝细胞癌。其进展涉及多条通路,其中“肠道菌群—胆汁酸—法尼醇 X 受体(FXR)轴”起关键作用。
甘氨鹅脱氧胆酸(glycochenodeoxycholate)由肝脏 CYP27A1、CYP8B1 等酶生成,又可被肠道菌酶去甘氨酸化,形成肝-肠往返;代谢相关脂肪性肝病患者血浆中该物质蓄积已有报道。菌群调节单独或联合 GLP-1 类药物改善病情的研究也在开展。
2)慢性肾病(CKD)
在 CKD 中,所有已报道的疾病相关生物标志物均由专性厌氧菌产生,其浓度通常在进食后 6~8 小时升高,并随疾病严重程度增加。
典型代表:
氧化三甲胺(TMAO):饮食中肉、蛋、奶来源的胆碱、左旋肉碱和甜菜碱,经厚壁菌门、变形菌门、放线菌门中 cutC/D 基因编码的胆碱-TMA 裂解酶转化为三甲胺(TMA),经门静脉入肝,被黄素单加氧酶 3(FMO3)氧化为 TMAO,再经肾脏排泄。慢性肾病排泄受阻,TMAO 蓄积可引发肾纤维化、炎症和动脉粥样硬化,已被归为尿毒症毒素。
苯乙酰谷氨酰胺(PAGln):同为肠道菌群-宿主共代谢产物,与心血管疾病及慢性肾病患者的认知障碍相关。
此外,吲哚硫酸盐、对甲酚硫酸盐等经芳香烃受体(AhR)等机制影响肾脏疾病进程。
3)药物性肝损伤(DILI)
研究指出,miRNA-122、HMGB1、角蛋白 18、谷氨酸脱氢酶等候选标志物特异性均偏低,目前尚无确立的 DILI 特异性生物标志物。这恰恰是 AI 多组学组合标志物策略的用武之地。
4)新生儿筛查中的菌群干扰
以异戊酸血症为例,亮氨酸除在人体线粒体中代谢外,还可被梭菌属、拟杆菌属、消化链球菌属、丙酸杆菌属等肠道菌的抗生素敏感酶代谢;新生儿接受抗生素治疗可能导致筛查假阳性。这说明不了解菌群状态,就无法准确解读代谢标志物。
AI 多组学的应用
现阶段,新提出的生物标志物在尚未完成验证时,往往以“标志物组合(panel)”形式使用。这与 AI 多特征建模的思路高度契合:单一代谢物易受饮食、菌群、肝肾功能多重影响,特异性有限;而将“膳食摄入—产毒菌丰度及功能基因—血/尿/粪代谢物—肝肾功能指标”纳入统一 AI 模型,才能区分吃进去的多、菌产得多、肝转化得多还是肾排得少,从而给出有指导意义的判断。
数据规模:跨越“平台级”门槛
如前所述,AI 在微生物组领域的核心约束是数据规模、标准化和表型质量。谷禾健康长期深耕肠道菌群检测,已积累百万例规模的肠道微生物组数据,并配套代谢组、蛋白组、膳食调查及健康问卷等多维数据。
这一规模使谷禾处于全球少数具备构建微生物组基础模型条件的机构之列:
足以支撑预训练
百万级样本可用于学习中国人群肠道微生物”语言”的通用表征,再迁移至具体疾病、具体场景。
足以覆盖长尾
罕见菌、罕见表型、特殊人群(婴幼儿、老年人、孕产妇、慢病人群)在大样本中才有足够的统计支撑。
足以构建人群参考
基于大规模健康与亚健康人群,建立按年龄、性别、地域、饮食分层的菌群参考区间,使”偏离正常”有据可依。
编辑
数据质量:标准化是模型可泛化的前提
多篇研究都在反复强调,批次效应和预处理不一致是可重复性的最大敌人。多中心、跨研究拼凑的公共数据往往难以避免这一问题。
同一机构在统一的采样、提取、建库、测序与生信流程下积累的数据,天然具备更低的技术噪声,更适合直接用于大模型训练,从源头保障模型的稳健性与泛化能力。
数据维度:多组学配对打通”菌-代谢-宿主”链
谷禾数据的独特价值在于多组学的配对:
微生物组:回答”有哪些菌、有多少、具备哪些功能基因“;
代谢组:回答”菌群实际产生了什么“,如短链脂肪酸、胆汁酸、TMAO、吲哚类、苯乙酰谷氨酰胺等;
蛋白组:回答”宿主做出了什么反应“,如炎症、屏障、代谢相关蛋白;
膳食调查:回答“输入是什么”,将 IJMS 综述强调的”饮食影响”从混杂因素转化为可建模变量;
健康问卷与临床信息:提供监督学习所需的表型标签。
这正是 Gut 与 Cell Systems 综述所指出的多组学整合方向的实际落地,也是肠-脑-肝胆-肾轴类复杂问题得以被准确解析的前提。
AI 与多组学的结合,将使肠道菌群检测报告发生本质性升级。
从描述到预测
传统报告告诉受检者”某菌偏高、多样性偏低”;基于大数据、AI的下一代肠道菌群报告将告诉受检者:基于你的菌群、代谢与饮食特征,你在代谢、肝脏、肾脏、心血管、肠道健康等维度的风险处于同龄人群的什么位置,未来趋势如何。
编辑
从单点到系统
以肠-脑-肝胆-肾轴为例,报告可整合产 TMA 菌丰度及 cutC/D 功能潜力、胆汁酸代谢菌群、相关代谢物水平与饮食结构,给出“代谢毒素负荷”的系统评估,并指出主要来源于饮食、菌群还是宿主代谢环节。
从结论到解释
每一项风险评分都附带可解释的贡献因素:
哪些菌、哪些代谢物;
哪些饮食习惯在推高或降低风险。
从报告到干预
基于个体特征的精准营养建议(如调整红肉、蛋黄等胆碱来源摄入,增加膳食纤维以促进短链脂肪酸产生),个性化益生菌/益生元选择,以及干预后的复测对比与轨迹追踪,形成 检测—解读—干预—复测的闭环。
从个人到产业
对医疗机构,提供辅助筛查与分层管理工具;
对药企与食品企业,提供菌群-药物互作、功能菌株筛选与临床试验人群分层支持;
对科研机构,提供高质量真实世界数据与分析平台。
如今,我们应当清醒地看到,建立社区级基准与标注数据集,推动微生物学家、数据科学家、临床医生与伦理学家的跨学科协作,开发可解释、可泛化、资源高效的模型——同样是产业界的行动纲领。
肠道微生物组的下一个十年,竞争的焦点不再是测序成本,而是数据规模、数据质量与 AI 能力的综合较量。
人工智能是这一转型的引擎,而大规模、标准化、多组学配对的数据则是引擎的燃料。上万篇的研究清楚表明,只有将饮食、菌群、代谢与宿主表型置于同一分析框架,才能真正读懂人体代谢的全貌。
主要参考文献
Cell Systems (2026). Artificial intelligence in microbiology and microbiome research: foundations, applications and challenges. PII: S2405-4712(26)00013-X.
Zhou T, Zhao F. Artificial intelligence in microbiome research. Gut 2026; 75: 1432–1446. doi:10.1136/gutjnl-2025-335946.
Mashima R, Ishige N. Role of the Gut–Liver–Kidney Axis in Disease Manifestation and Biomarker Alterations. Int. J. Mol. Sci. 2026; 27: 8201. doi:10.3390/ijms27188201.
Application of artificial intelligence in gut microbiota analysis and intervention. Current Research in Biotechnology 2024; 7: 100211.
Microbiome and artificial intelligence in disease prediction: a systematic review. (S2590-0056(26)00233-X), 2026.
谷禾健康
谈到代谢与衰老,我们习惯按器官划分问题:血糖异常归到胰腺和肝脏,脂肪堆积归到脂肪组织,肌少症归到骨骼肌,骨质下降归到骨骼,记忆力减退则归到大脑。但越来越多研究显示,身体并不是由彼此孤立的器官拼接而成,而是一个持续交换信息、共同调整状态的动态网络。
脂肪组织可以向大脑发送信号,骨骼肌可以把运动状态“报告”给脂肪、骨骼和海马体,骨骼也能通过分泌因子影响胰岛素敏感性和能量代谢;与此同时,代谢物、细胞因子、细胞外囊泡、微小RNA,甚至线粒体相关的压力信号,都可能在器官之间传递信息。大脑中的下丘脑则像一个高层级的整合中枢,把来自外周的激素、代谢和感觉信息汇总起来,再通过自主神经系统把调节指令发送回去。
这套机制被称为器官间通信(inter-organ communication,IOC)。它不仅帮助机体维持血糖、能量、体温、骨量和免疫状态等代谢稳态,也可能参与衰老速度和健康寿命的调节。文献指出,随着年龄增长,原本有益的器官间信号可能减弱,而慢性炎症、衰老相关分泌表型等不利信号则逐步增加,最终形成一个“全身性”的功能衰退回路。
从这个角度看,衰老更像是一张通信网络逐渐失去弹性:有些通路变慢,有些反馈失真,有些信号长期处于“过度发送”状态。理解这些变化,不是为了把某一种检测结果直接等同于衰老,也不是为了寻找一个可以包治百病的指标,而是为了更好地理解身体各系统之间怎样互相影响,以及未来如何更精准地干预。
传统生理学通常把垂体、肾上腺、胰腺、甲状腺、睾丸和卵巢视为经典内分泌器官。它们通过激素进入血液,作用于远处组织。
如今,研究者越来越倾向于把“内分泌器官”的概念扩展到更多组织:只要一个组织能够释放体液信号,并对远处细胞产生可重复的生理影响,它就可能是全身通信网络的一部分。
✲ 身体可以使用多种“通信语言”
脂肪组织、骨骼肌和骨骼过去常被视为储能、运动或支撑结构,但它们都能分泌具有远程作用的分子。脂肪细胞因子(adipokines)、肌因子(myokines)和骨源性因子共同构成了一个复杂的分泌网络。
器官之间的通信也并不只有一种“语言”:有时是可溶性的激素和细胞因子,有时是包裹在细胞外囊泡里的蛋白质、脂质和核酸,有时是代谢物浓度的改变,有时则通过感觉神经和交感神经完成。
✲ 从单个分子走向整体网络
这种多层次通信的意义在于,一个器官的状态变化可以迅速影响整个机体。例如,运动使骨骼肌收缩,肌肉不仅消耗能量,还释放一批肌因子;这些信号可以作用于脂肪组织、肝脏、骨骼、血管和大脑,帮助身体适应运动负荷。相反,长期炎症、肥胖或久坐也会改变分泌信号的组成,使不同器官之间的反馈逐渐偏向代谢失衡。
过去三十年里,胰岛素/胰岛素样生长因子1(IGF-1)信号、雷帕霉素机制靶标(mTOR)信号以及依赖 NAD+ 的 Sirtuin 家族脱乙酰酶/去酰基酶等通路,被认为是连接代谢、衰老和寿命调控的重要节点。
现在,组学技术和遗传工程工具进一步让研究者能够追踪“谁在分泌、分泌了什么、到达哪里、产生了什么效应”,从而把研究视线从单个分子扩展到器官之间的整体关系。
脂肪细胞因子能影响代谢稳态
瘦素和脂联素的发现改变了人们对脂肪组织的认识。脂肪组织并非被动的能量仓库,而是能够感知营养状态、炎症状态和运动刺激,并把这些信息以分泌因子的形式传递出去。
脂肪组织可以分泌转化生长因子-β2
研究显示,运动刺激后,脂肪组织可以分泌转化生长因子-β2(TGF-β2),在小鼠中改善葡萄糖耐受。
脂肪组织还可以分泌细胞外烟酰胺磷酸核糖转移酶(eNAMPT)。与主要参与细胞内 NAD+ 合成的 iNAMPT 不同,eNAMPT 可以被装载进细胞外囊泡,进入循环后到达下丘脑、海马、伏隔核、胰腺和视网膜等部位,促进局部 NAD+ 生物合成。
NAD+ 是许多细胞代谢与应激反应的重要辅酶,也是 SIRT1 等蛋白去乙酰化酶发挥作用所需的分子。
研究表明,脂肪组织来源的 eNAMPT-EV 信号与小鼠的衰老表型和寿命存在联系,但这并不意味着“提高某一个分子”就能直接延长人的寿命。现有证据主要来自细胞和动物模型,距离人群干预仍有很长的验证路径。
白色脂肪、棕色脂肪与“产热沟通”
棕色脂肪组织还可以分泌一类被称为棕色脂肪因子(batokines)的体液因子。它们既能在局部发挥自分泌和旁分泌作用,也可能进入循环,对远处器官产生影响。
需要注意的是,目前并没有一个已经被普遍确认、且只由棕色脂肪特异分泌的“唯一 batokine”。因此,batokine 更准确地说是一个功能性分类:指相对偏向由棕色脂肪组织分泌、并具有内分泌作用的因子。
脂肪能向其他组织反馈营养与应激状态
白色脂肪组织也可以在特定刺激下发生“米色化”或“褐变”,表达解偶联蛋白1(UCP1),增强产热。运动、寒冷和某些肌因子可能参与这一过程。由此可见,脂肪组织与骨骼肌之间并非单向关系:肌肉活动能够影响脂肪的能量处理方式,脂肪又能向大脑和其他组织反馈营养与应激状态。
肌肉收缩也是一种“分泌事件”
运动的好处当然包括消耗多余能量,但“运动为什么能改善全身代谢”并不能只用热量消耗解释。骨骼肌收缩时,会释放一系列被称为肌因子的信号蛋白。
肌因子如何连接脂肪、骨骼和大脑?
白细胞介素6(IL-6)和肌肉生长抑制素(myostatin)是研究较早、较充分的肌因子。肌肉来源的 IL-6 可以参与多个组织的葡萄糖处理、脂肪分解、氧化代谢和能量消耗;myostatin 则与胰岛素敏感性、葡萄糖利用及骨形成有关。FGF21和irisin 等因子可能促进白色脂肪细胞表达 UCP1,从而增强产热。
肌因子可能具有神经保护、心脏保护、骨形成等作用
运动对大脑的影响也可能部分依赖肌肉分泌信号。irisin 和组织蛋白酶B(cathepsin B)被报道可以通过诱导脑源性神经营养因子(BDNF),促进海马神经发生并产生神经保护效应。
另一些肌因子则与血管生成、骨形成和心脏保护有关。换句话说,一次运动产生的“信息”并不会停留在肌肉局部,而可能被分配给多个器官。
这里的关键不是把某一个肌因子包装成“运动替代品”,而是理解运动的系统效应:肌肉收缩、神经活动、激素变化、代谢物变化和免疫反应是同时发生的。
未来真正有价值的研究,可能不是寻找单一的“运动神奇分子”,而是解析不同信号组合在不同年龄、性别和代谢状态下的作用。
骨钙素与全身能量代谢有关
骨骼长期以来被视为支撑身体、保护内脏和储存矿物质的结构。近年来的研究进一步显示,骨骼可以作为复杂的内分泌器官,参与全身能量代谢调节。
骨钙素是骨组织产生的重要因子之一。循环骨钙素与胰岛素分泌、胰岛素敏感性、血糖水平和内脏脂肪组织等指标有关。骨髓间充质干细胞除了参与骨髓微环境和造血调控,也可以分泌影响全身能量代谢的活性分子。
编辑
骨骼也在向大脑反馈信息
骨髓间充质干细胞能调节胰岛素抵抗
一个具有代表性的例子是骨髓间充质干细胞来源的外泌体 miR-29b-3p。研究提示,它可以通过 SIRT1 信号调节与年龄相关的胰岛素抵抗。
不过这里需要强调,动物模型中的机制发现不等于临床上已经可以用骨钙素或某一种 miRNA 诊断衰老,更不等于单独补充某个因子就能复制完整的骨—胰腺—脂肪轴效应。
骨骼还与神经系统形成双向回路。骨细胞释放的前列腺素E2(PGE2)可以激活感觉神经上的 EP4 受体,信号上行至腹内侧下丘脑核(VMH),再调节下行交感神经张力,影响骨髓间充质干细胞向成骨细胞分化。骨骼因此不只是“接受激素调节”的终端,也可能把局部状态反馈给大脑。
细胞外囊泡(EVs)是由细胞释放到细胞外空间的脂质双层颗粒,大小和组成具有异质性。它们能够携带蛋白质、脂质、代谢相关分子和核酸,从而把一批信号完整地送到远处组织。
为什么EVs还不能当作成熟的衰老指标?
运动诱导的骨骼肌来源 EVs,被认为能够重塑代谢并产生有益的心血管效应;年轻血浆来源的小型 EVs 也在小鼠研究中显示出改善线粒体能量代谢、缓解部分年龄相关功能下降的潜力。
与此同时,EVs 还可能参与细胞衰老、代谢功能障碍、心血管疾病、肿瘤和神经退行性疾病等过程。
但 EVs 的研究仍处在“看见局部、尚未完全了解”的阶段。我们知道它们能够运输信息,却还不完全清楚:哪些因子被装入哪一种 EVs,哪些 EVs 会被哪些细胞摄取,剂量、时间和年龄如何改变效果。将“检测到某类 EVs”直接等同于“预测一个人的衰老速度”,目前缺乏足够依据。
循环代谢物记录着多个器官的代谢状态。代谢物谱发生变化,往往意味着代谢流、能量利用或细胞稳态出现了调整。它们不仅是反应的“产物”,也可能反过来作为信号分子,改变远处组织的行为。
从α-酮戊二酸到单不饱和脂肪酸都可能与寿命相关
例如,α-酮戊二酸是三羧酸循环中的关键代谢物。动物研究显示,补充 α-酮戊二酸可以延长小鼠寿命、压缩患病期,并降低系统性炎症细胞因子水平。
脂质代谢物中的单不饱和脂肪酸(MUFAs)也在动物模型中与寿命延长相关,遗传学或膳食方式增加 MUFAs 都可能产生类似结果。
在代谢和衰老过程中不同器官之间通信所涉及的成分
编辑
doi: 10.1016/j.tem.2024.11.013.
细胞因子与衰老相关分泌表型
细胞因子并非天然有害
细胞因子并不天然等于“坏信号”。在合适的时间、剂量和组织环境中,它们可以帮助器官适应挑战;但当信号持续升高、失去控制,便可能推动全身功能下降。
在果蝇中,细胞因子 unpaired 1(upd1)可以通过睾丸—肠双向作用,调节肠道代谢、精子发生和摄食。哺乳动物研究则显示,外源给予血小板因子4(PF4,也称 CXCL4)可能减轻老年小鼠海马炎症,改善突触可塑性和认知表现。
炎症信号何时会变成系统性风险?
另一面是炎症因子过度释放。急性胰腺炎可能通过细胞因子介导的炎症反应造成肺和肠道等多器官损伤;COVID-19 严重病例中的“细胞因子风暴”则说明,促炎因子持续高水平释放会导致组织损伤、多器官衰竭甚至死亡。
注:果蝇肝样细胞中年龄依赖性升高的 upd3(与哺乳动物 IL-6 同源)也被报道与心脏衰老有关。
编辑
衰老细胞的衰老相关分泌表型(SASP)是另一个重要环节。衰老细胞可以分泌炎症细胞因子、免疫调节分子、生长因子和蛋白酶,推动“炎症性衰老”。因此,清除衰老细胞的Senolytics(衰老细胞清除剂),以及抑制 SASP 的Senolytics(衰老细胞裂解剂)或 senomorphics,都成为研究热点。
不过,衰老细胞并不总是有害。部分高表达 p16 的衰老细胞参与维持血液—组织屏障;如果不加区分地清除,可能引起肝脏和血管周围组织纤维化,反而损害健康。近期研究也提示,衰老并非单一状态,而是包含多个细胞状态和组织生态位。因此,与其简单地“清除所有衰老细胞”,更可能的方向是精准调节其分泌表型,例如影响 NF-κB、JAK-STAT 和 mTOR 等参与 SASP 激活与维持的通路。
非编码RNA也能跨器官传递
miRNA如何搭乘EVs跨组织移动?
微小RNA(miRNA)属于非编码RNA,可以通过转录后基因沉默调控基因表达,并参与表观遗传重编程。它们是细胞外囊泡(EVs)中研究较多的信号成分之一。
脂肪组织来源细胞外囊泡(EVs)及其携带的 miRNA 可以通过膜蛋白依赖的方式进入大脑,在肥胖且存在胰岛素抵抗的小鼠中与认知变化相关。在线虫中,miRNA 可以通过 EVs 在不同组织之间运输,并表现出组织特异性的年龄变化。小鼠全身 ncRNA 图谱也发现,随着年龄增长,一组 miRNA 广泛失调,它们可能通过血浆因子和 EVs 参与全身衰老调节。
编辑
RNA概念带来了什么新视角?
下丘脑神经干细胞释放的 miRNA 与衰老速度有关;而年轻来源 EVs 中的 miRNA 可能通过刺激 PGC-1α、增强线粒体能量代谢,缓解部分年龄相关功能障碍。
对于检测而言,miRNA 或其他 RNA 信号的变化很有吸引力,但它们高度依赖样本类型、提取方法、测序平台、年龄、药物和生活方式。单个 miRNA 的升降通常不能脱离整体背景解释,也不能直接作为健康寿命的结论。
线粒体压力:细胞器也会“跨组织报警”
一个组织的线粒体压力如何影响其他组织?
器官间通信的一个新方向,是把细胞器本身纳入通信网络。在研究中,神经元线粒体受到活性氧、代谢副产物等因素造成的压力后,可以触发肠道的线粒体未折叠蛋白反应(UPRMT),帮助恢复蛋白质正确折叠并清除受损蛋白。
线粒体运输可能成为新的通信路径
生殖系线粒体还可以通过神经元整合组织间的线粒体压力,调节脂质代谢,进而在外周组织激活 UPRMT,帮助维持整体健康和寿命。具体由哪一种分子承担跨组织信使角色,目前仍需进一步确定。
此外,微囊泡、凋亡小体、迁移体和 exopher 等大型细胞外结构,可能携带完整或受损的线粒体,为线粒体运输和器官间通信提供新的可能。随着细胞类型特异性的分泌组分析技术发展,研究者有望更准确地追踪“哪类细胞释放了什么”,并在血液中识别潜在的器官间信号。
从“血液里有什么”追溯“谁释放了什么”?
器官间通信之所以难研究,关键在于血液中的蛋白和核酸来自许多组织,单纯测量“血液里有什么”很难判断来源。
有研究介绍了一类接近“分泌物追踪器”的工具:利用 BioID 或 TurboID 等邻近标记酶,在特定细胞的内质网或分泌通路附近给新合成、即将被释放的蛋白加上生物素标签,再从血浆中富集这些标签化蛋白,结合液相色谱—串联质谱进行鉴定。
找到候选信号之后,还要验证什么?
还可以将 TurboID 的表达限定在特定 Cre 阳性的细胞,从而在体内建立“细胞类型—分泌蛋白—循环信号”的对应关系。BirA*G3 小鼠则提供另一种遗传学标记策略,可在不依赖病毒转导的情况下,特异性标记经内质网运输的蛋白。借助这些工具,研究者得以解析在运动、衰老或疾病状态下,究竟哪些细胞改变了分泌谱。
不过,血液中被标记的蛋白未必都是器官间通信的关键效应分子,还需进一步结合受体鉴定、组织定位、动态变化及功能干预来验证。工具的作用在于帮助筛选“候选信号”,但不能替代机制层面的验证,直接将候选分子当作诊断指标或治疗靶点。
外周器官如何把状态“上传”到大脑?
器官之间的通信既有体液通路,也有神经通路。背根神经节中的体感神经元,以及颈静脉和结节神经节中的迷走感觉神经元,可以感知外周器官微环境变化,再把信息上传至大脑。
下丘脑收到激素、细胞因子和感觉输入后,再通过自主神经系统把调节信号发送回外周。
下丘脑如何把感觉信号变成代谢调节?
与感觉相关的神经元还能影响体重和葡萄糖稳态
一组原本与疼痛、触觉和本体感觉相关的背根神经节神经元,被发现能够调节脂肪组织和骨骼等代谢活跃器官。切除投射到白色脂肪组织的体感神经元,会改变脂肪组织功能,并引起体重和葡萄糖稳态变化。
骨骼也有一条清晰的“骨—感觉神经—下丘脑—交感神经”路径:骨细胞产生的 PGE2 激活感觉神经上的 EP4,信号进入腹内侧下丘脑核;随后,下行交感神经张力发生变化,影响骨髓间充质干细胞向成骨细胞分化。
编辑
瘦素等体液因素还可以调节下丘脑发出的自主神经刺激。当前仍不清楚体液反馈和感觉反馈如何在大脑中精确整合,但它们显然共同参与代谢稳态和行为反应。
下丘脑为何被视为衰老和长寿的高层级控制中心?
下丘脑中的SIRT1与衰老和寿命调节关系密切
代谢稳态和代谢可塑性的下降,是衰老的常见特征。2013年,两项独立研究都指出,下丘脑在哺乳动物衰老和寿命调节中具有重要作用。
下丘脑背内侧核(DMH)和外侧下丘脑(LH)中的 SIRT1,可以延缓小鼠衰老并延长寿命;抑制下丘脑中基底部(MBH)神经元的 NF-κB 活性也能延长小鼠寿命,而激活它则会缩短寿命。
下丘脑信号失衡与衰老代谢
下丘脑 mTORC2 信号缺失的小鼠可出现活动减少、脂肪设定点升高、易因饮食而肥胖,且老年期虚弱加重、总体生存期缩短。DMH 中 SIRT1 的下游靶标 Prdm13 参与调节白色脂肪分解与睡眠—觉醒节律;Prdm13 缺失则导致睡眠片段化、脂肪堆积和活动减少等年龄相关表型。
此外,下丘脑还调控激素分泌。随年龄增长,GnRH 分泌受损,垂体黄体生成素下降,下丘脑神经干细胞也减少。下丘脑慢性炎症同样可能损害代谢并促进衰老;单细胞 RNA 测序显示,年龄相关炎症信号在小胶质细胞和巨噬细胞中逐渐增强。
下丘脑—脂肪组织神经体液反馈环
近年来备受关注的一项发现是下丘脑与白色脂肪组织之间存在神经—体液反馈回路。DMH 中 Ppp1r17 神经元可通过交感神经调控白色脂肪组织;随年龄增长,这类 DMH^Ppp1r17 神经元活性下降,导致体力活动减少、脂肪分解减弱,并降低脂肪组织分泌 eNAMPT。遗传学或化学遗传学激活这些神经元,能在老年小鼠中改善部分年龄相关功能衰退,延缓衰老并延长寿命。
器官间通信的神经元与体液层面的整合
编辑
doi: 10.1016/j.tem.2024.11.013.
同时,eNAMPT-EVs 还能促进 DMH 的 NAD+ 合成。研究者据此提出:DMH^Ppp1r17 神经元与脂肪组织可能构成关键反馈环——下丘脑经交感神经发出信号,脂肪组织释放含 eNAMPT 的 EVs,而 EVs 进一步反馈调节下丘脑局部代谢。
该发现颇具意义,但目前主要基于动物研究,尚难直接转化为人类检测或治疗方案。
肠道及其微生物群应当被放在一个重要位置。肠道不仅负责消化吸收,也会产生或改造胆汁酸、短链脂肪酸等代谢物;这些分子能够影响肠道屏障、免疫反应、肝脏代谢以及神经系统。
肠道菌群检测可覆盖菌群构成、多样性、差异菌群、代谢通路预测、疾病风险及营养饮食分析等内容;宏基因组还能进一步关注基因构成、毒力基因和抗生素耐药基因。
肠道是器官间交流的重要枢纽。肠道菌群及其代谢产物参与其中,能够通过代谢、免疫和神经等通路,连接、转化,并在一定条件下放大或减弱器官之间的信号传递。它们既可能影响其他器官的功能,也会随着宿主生理状态的改变而变化,使肠道成为观察多器官相互作用的重要窗口。
谷禾健康也正在构建基于多组学的健康状态轴的分析模型,从不同维度全面反映涵盖炎症、免疫、代谢和衰老以及各个器官的健康轴状态。沿着这一思路,肠道菌群检测的价值不仅在于了解肠道本身,也在于为理解器官之间的“对话”提供一个切入点,为后续的健康评估、针对性检查和长期跟踪提供参考。
编辑
<来源:谷禾健康数据库>
器官间通信把代谢和衰老从“单器官问题”重新放回全身网络中。脂肪组织释放的因子、骨骼肌运动后的肌因子、骨骼分泌的骨钙素、细胞外囊泡携带的微小RNA、血液中的代谢物、衰老细胞释放的衰老相关分泌表型,以及线粒体压力引发的远程反应,共同构成了一个持续更新的信号系统。下丘脑则把这些体液和神经信息整合起来,协调能量平衡、激素、睡眠、运动、骨代谢和衰老相关过程。
这套系统的核心不是某一个“长寿分子”,而是通信是否仍然准确、灵活、具有反馈能力。随着年龄增长,保护性信号减少、慢性炎症增加、神经整合能力下降,器官之间的“对话”可能逐渐失真。未来的研究需要回答:器官间通信的衰退从哪里开始?是否存在决定寿命的特定下丘脑神经元群?下丘脑—脂肪、下丘脑—骨骼肌等不同轴线如何彼此协作?
对于普通人而言,建立“长期、系统、可验证”的健康观察方式:保持规律运动和稳定睡眠,关注饮食结构与代谢指标,必要时在专业指导下进行肠道菌群或其他检测,并把结果放回整个身体的生理背景中理解。
当我们开始关注器官如何彼此影响,健康管理也会从“哪里坏了修哪里”走向“如何让整个系统保持韧性”。这或许正是器官间通信研究带给健康衰老领域最重要的启发。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Tokizane K, Imai SI. Inter-organ communication is a critical machinery to regulate metabolism and aging. Trends Endocrinol Metab. 2025 Aug;36(8):756-766.
Vitale G et al. (2019) ROLE of IGF-1 System in the Modulation of Longevity: Controversies and New Insights From a Centenarians’ Perspective. Front Endocrinol (Lausanne) 10, 27. 10.3389/fendo.2019.00027
Papadopoli D et al. (2019) mTOR as a central regulator of lifespan and aging. F1000Res 8. 10.12688/f1000research.17196.1
López-Otín C et al. (2023) Hallmarks of aging: An expanding universe. Cell 186, 243–278. 10.1016/j.cell.2022.11.001
Tokizane K et al. (2024) DMH(Ppp1r17) neurons regulate aging and lifespan in mice through hypothalamic-adipose inter-tissue communication. Cell Metab. 10.1016/j.cmet.2023.12.011
Savini M et al. (2022) Lysosome lipid signalling from the periphery to neurons regulates longevity. Nat Cell Biol 24, 906–916. 10.1038/s41556-022-00926-8
Bany Bakar R et al. (2023) The intestine as an endocrine organ and the role of gut hormones in metabolic regulation. Nat Rev Gastroenterol Hepatol 20, 784–796. 10.1038/s41575-023-00830-y
Zhou R et al. (2021) Endocrine role of bone in the regulation of energy metabolism. Bone Res 9, 25. 10.1038/s41413-021-00142-4
Yoshida M et al. (2019) Extracellular Vesicle-Contained eNAMPT Delays Aging and Extends Lifespan in Mice. Cell Metab 30, 329–342.e325. 10.1016/j.cmet.2019.05.015
谷禾健康
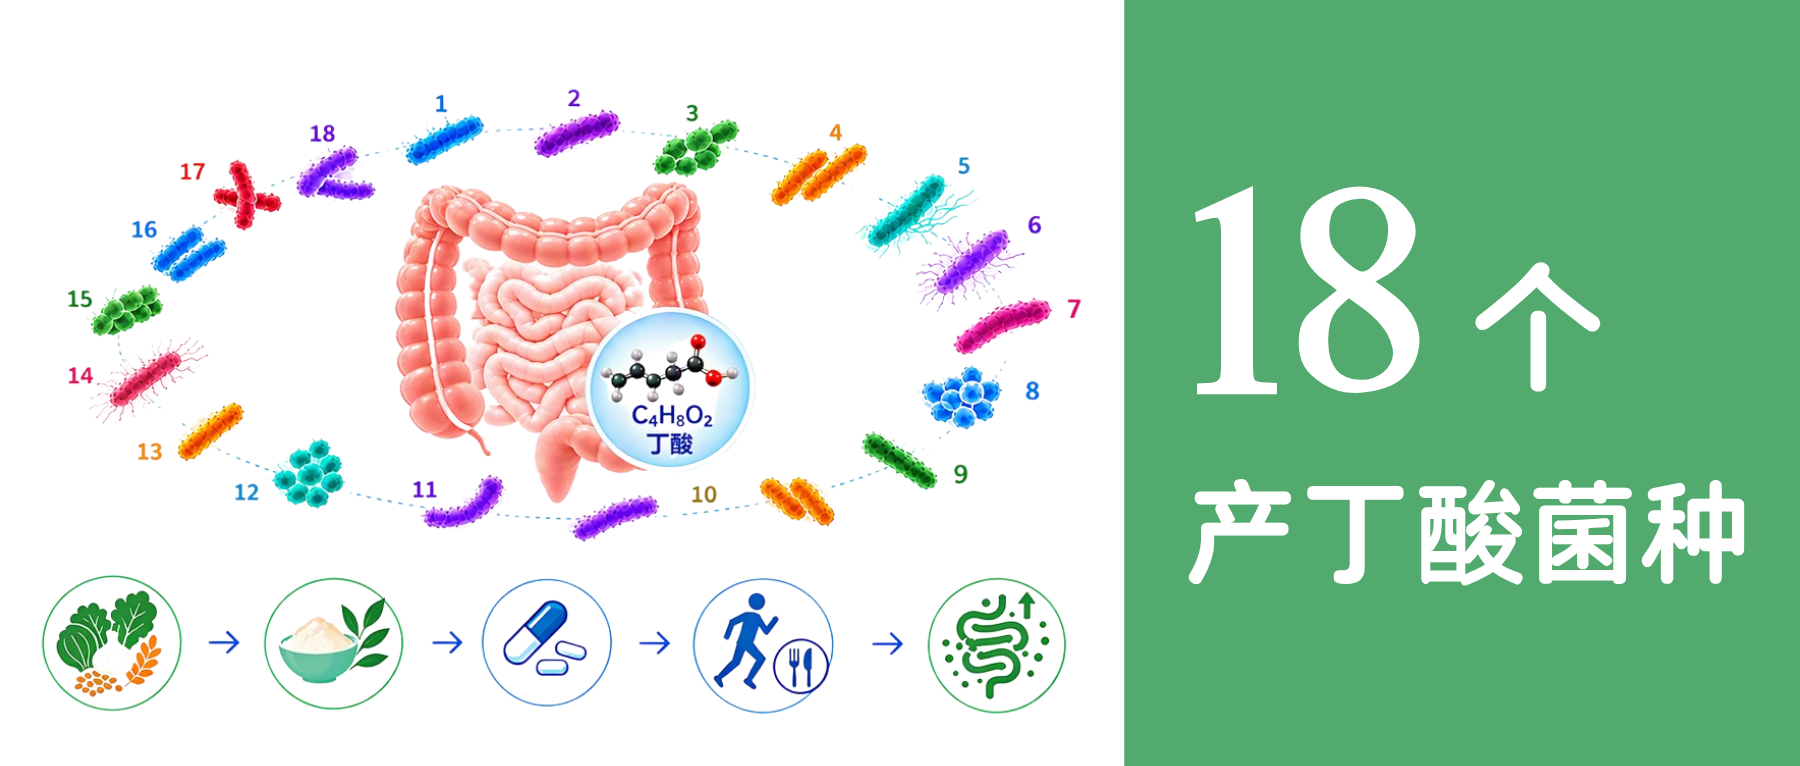
产丁酸物种与内源丁酸
肠道菌群与人体健康之间,存在着一座由微生物代谢产物搭建的“沟通桥梁”,丁酸便是其中的重要成员。作为肠道微生物发酵膳食纤维、抗性淀粉等底物产生的短链脂肪酸,丁酸不仅是结肠上皮细胞的重要能量来源,还参与维持肠道屏障、调节免疫反应和局部炎症,帮助塑造有利于肠道微生态稳定的环境。近年来,丁酸在能量代谢、氧化应激及结直肠癌相关机制中的潜在作用越来越不容忽视。
此前,我们介绍过普氏栖粪杆菌,以及罗氏菌属、厌氧棒状菌属、丁酸弧菌属等常见产丁酸菌属。这一次,我们将进一步把目光聚焦到具体菌种,认识几位值得关注的肠道重要“丁酸生产菌种”,了解它们的代谢特点、在微生态中的作用,以及与宿主健康之间的联系。
(以前单独介绍过)
人体肠道丰度最高的产丁酸菌之一,丁酸为结肠上皮供能、上调紧密连接、抑制NF-κB并促GLP-1;编码的脂肪酸酰胺水解酶参与改善儿童营养不良,可抵抗病原定植并增强肠癌免疫治疗。IBD与2型糖尿病中显著降低,与HOMA-IR、HbA1c负相关,是肠道健康风向标。
人体结肠核心产丁酸菌,发酵抗性淀粉和膳食纤维产大量丁酸供结肠上皮,改善上皮细胞谷氨酰胺紊乱、下调肠炎,与HbA1c和炎症标志物负相关。在银屑病、银屑病关节炎及克罗恩病患者肠道中显著耗竭,在非肥胖型代谢相关脂肪性肝病中反而增加,提示其变化具有疾病和宿主情境依赖性。
真杆菌属成员,产丁酸,参与膳食纤维发酵,与代谢健康指标相关,丰度下降常与菌群失调和代谢紊乱相关。与血浆高密度脂蛋白胆固醇呈正相关,发挥心血管保护作用,对维持肠道能量供应和屏障健康具有重要意义。其适量存在有助于代谢稳态,过度耗竭则提示肠道产丁酸能力和屏障功能下降。
产丁酸菌,发酵膳食纤维产丁酸,改善代谢并抗炎,与较优代谢表型相关;代谢紊乱人群中丰度下降。作为产丁酸菌群的新成员,其中菌株SR79可改善认知功能并减少神经病理损伤,显示出代谢与神经保护的双重潜力,是值得关注的有益新菌。
厌氧丁酸菌,利用乳酸和乙酸交叉喂养高效产丁酸,是肠道丁酸池的重要贡献者,能维护肠屏障、抑制炎症。参与谷氨酸代谢,与膳食纤维摄入和代谢状态相关,并参与调控人体情绪。在多种自身免疫疾病患者中丰度降低,属有益产丁酸菌。
罗斯氏菌属成员,消耗乙酸产丁酸,参与胆汁酸代谢和膳食纤维发酵,为结肠上皮供能并抑制炎症,与较优代谢表型相关。在健康人群中稳定存在,其丰度常作为评估菌群产丁酸能力的参考菌种;丰度过低提示产丁酸能力下降,与肠屏障受损、低度炎症和代谢紊乱相关,过量或与其他产丁酸菌竞争则意义有限,属有益产丁酸菌。
人罗斯氏菌,产丁酸,IBD患者中显著降低,能抑制炎症、缓解中枢神经炎症并保护肠屏障,是罗斯氏菌属代表。关键代谢产物烟酰胺核苷(NAD+前体)可预防饮食诱导的代谢紊乱,有潜在抗肥胖作用,并提高雌激素生物利用度以预防骨质疏松;其丰度是肠道抗炎能力的重要指标。
高效产丁酸菌,维护肠屏障、抑制低度炎症并改善胰岛素敏感性。2型糖尿病和肥胖中降低,与胰岛素敏感性正相关,可降低内毒素血症与动脉粥样硬化斑块负荷;在克罗恩病和溃疡性结肠炎中降低,能增强抗PD-1抑瘤疗效,动物实验补充可改善葡萄糖耐量。
菌株筛选鉴定出的新型抗高脂血症候选益生菌,产乙酸、丙酸、丁酸,具抗炎和降脂活性。动物实验证实其可改善高脂饮食性高脂血症,与较低总胆固醇、甘油三酯相关,是具降脂潜力的有益菌。丰度偏低与血脂异常和代谢紊乱相关,适量补充或富集可能有助于改善脂代谢,值得进一步临床验证。
Nat Med 2025年1167人队列鉴定为血糖控制网络的关键有益枢纽菌,能产短链脂肪酸并抑制有害菌。其减少与血糖异常和胰岛素抵抗相关,是代谢保护的重要靶点,被视为维护糖代谢稳态的核心有益菌,补充或富集具潜在代谢改善价值。
属厚壁菌门梭菌IV群的产丁酸菌,在IBD患者中丰度显著降低,动物模型中补充可减轻结肠炎、促进屏障修复,被视为有治疗潜力的益生菌候选。神经发育障碍患儿中丰度也偏低,提示其对肠道炎症敏感,是反映肠道炎症状态的敏感指示菌。
产丁酸单胞菌属成员,发酵碳水产丁酸和丙酸,维护肠屏障、抑制炎症并调节代谢,在健康人群中常见。代谢紊乱和肠道炎症时其丰度下降,提示其减少与屏障受损、炎症及代谢异常相关,是反映肠道产丁酸能力与健康状态的有益菌之一。
丁酸梭菌,是典型产丁酸益生菌,能增强紧密连接、抗炎、抑制病原并改善菌群;孢子制剂稳定性好。CBM588可改善IBS-D、预防UC术后储袋炎,2025年研究显示其可增强结直肠癌抗PD-1疗效。临床用于腹泻及抗生素相关性肠炎辅助调理;免疫低下者极少可发生益生菌相关菌血症,少数毒株可产E型肉毒毒素,菌株差异明显。
柔嫩梭菌为Clostridium leptum群代表,发酵多种膳食纤维产丁酸,是产丁酸菌群重要成员,常作产丁酸能力指标。IBD和代谢紊乱中减少,克罗恩病与溃疡性结肠炎患者粪便及黏膜中显著耗竭,剖宫产婴儿缺乏其定植。丰度平衡是维系肠上皮稳态与肠肺、肠代谢轴健康的重要基础。
伴生粪球菌,产丁酸,参与膳食纤维发酵,与肠道健康和低炎症状态相关,在健康人群中较常见。其丰度与宿主代谢和免疫状态相关,是反映肠道产丁酸能力和整体健康水平的有益共生菌;丰度过低常伴随菌群失调和代谢紊乱,维持适量水平有助于肠道抗炎和屏障健康。
产生乙酸和丁酸、具抗炎作用的肠道共生菌,2型糖尿病中显著减少,与炎症标志物负相关,动物实验补充可改善葡萄糖稳态,是评估肠道健康的重要指示菌。在语言发育迟缓儿童中显著降低,小鼠中可改善抑郁样行为,帕金森病患者肠道中丰度降低并与腹部不适相关。
以赖氨酸、果糖-赖氨酸为底物产丁酸,开辟不依赖膳食纤维的丁酸生成途径,抗炎并改善代谢,可减缓体重增加、改善血糖,并增强黏膜适应性防御机制。在低纤维饮食人群中尤具生态学意义,是该人群维持丁酸供应、维护肠屏障与黏膜免疫的重要补偿菌,也是对膳食纤维依赖度低的有益新型产丁酸菌,具备潜在的益生开发价值。
挑剔毛螺菌(旧称Eubacterium eligens),产丁酸,在动脉粥样硬化、血脂异常和IBD人群中持续耗竭,其减少提示肠道抗炎与代谢保护能力下降;能修复肠道与血脑屏障完整性、抑制神经炎症以减轻癫痫发作。但部分研究显示自闭症儿童中其丰度增加,作用具情境依赖性。
p.s.
谷禾健康肠道菌群检测报告涵盖上述物种,展示:个体检出情况、参考范围及人群检出率,帮助了解产丁酸相关菌群,为科学调节菌群、改善肠道和健康提供参考。
对于日常肠道健康,基础的策略是摄入适量、自己能够耐受的膳食纤维和抗性淀粉,调节产丁酸菌,进行内源产生丁酸,这个的健康益处更大。
益生元是直接滋养微生物群的食物,包括蔬菜、水果、豆类和全谷物。它们含有膳食纤维,可被肠道细菌发酵成丁酸盐等有机化合物。通过食物增强微生物群是促进消化系统健康和丁酸盐生成的有效且安全的方法。
高蛋白、高脂肪、同时低纤维化合物的饮食已被证明会破坏微生物组中丁酸盐的产生。在一项研究中,研究人员分析了短期饮食限制碳水化合物摄入量的肥胖参与者的微生物组,从而限制了他们对植物性膳食纤维的消耗。
在低碳水化合物饮食(每天 24 克)和中等碳水化合物饮食(每天 164 克)4 周后,短链脂肪酸的浓度低于高碳水化合物饮食(每天 399 克)。具体来说,当碳水化合物摄入量减少时,丁酸盐浓度会降低。同一项研究还发现,厚壁菌门细菌种类 Roseburia 和 E. Rectale的密度与丁酸盐浓度之间存在联系,两者都随着碳水化合物摄入量的减少而降低。
然而,以上所谓的“膳食纤维”并不能完全解决这个问题,为什么呢?
理解以下几点很重要:
1、即使是来自同一菌属的菌种,对不同底物的反应也不同。
2、某些细菌能够消化果聚糖,有些则不能。而那些可以消化的里面又有不一样的情况,其中一些能够消化短链的果聚糖,但不能消化更长链菊糖的果聚糖。
3、以上只是细菌消化不同底物能力的一个例子。由于这种变化的存在,不能一概而论。
而我们最需要的,拥有丰富多样的产丁酸菌群构成和寻找特定适合自己类型的纤维。
一项研究表明,不同类型碳水化合物的SCFA产量(单位:kJ)如下所示:
Bourassa MW, et al., Neurosci Lett. 2016
在该研究中,低聚果糖(FOS)的类型是洋葱、芦笋和香蕉等食物,而抗性淀粉(RS)则是全谷物和豆类。
另一项研究表明,补充特定猕猴桃中发现的低聚果糖可在4周内使 F. prausnitzii 增加100%。这是一项重大发现,因为目前有大量研究报告,F.prausnitzii 的相对缺乏与几种主要肠道疾病有关——最显著的是炎症性肠病(溃疡性结肠炎和克罗恩病)。
抗性淀粉2型和3型,哪种更好?
这项研究表明,从生马铃薯和高直链淀粉玉米淀粉以及全谷物中发现的阿拉伯木聚糖中提取的2型抗性淀粉含量高的日粮中丁酸产量显著增加。
在174名健康年轻人的饮食中添加马铃薯抗性淀粉后,丁酸盐产量增加。玉米、菊苣和玉米中的抗性淀粉也进行了测试,但只有当食用土豆中的抗性淀粉时,粪便中的丁酸总量才会显著增加。
对于这种类型的抗性淀粉(RS2)是否对人类“有益”存在不同的观点,有多个来源表明,RS3是一种更好的来源,因为RS2似乎可以喂养有害细菌,而RS3可以喂养有益细菌。
此外,鳄梨(牛油果)增加了能够产生短链脂肪酸的微生物数量,以及产生的总短链脂肪酸。
果聚糖(菊粉)
许多研究表明,菊粉可以增加短链脂肪酸的产量,包括丁酸盐。这可能解释了香蕉在溃疡性结肠炎和克罗恩病患者的饮食中如此有效的原因之一。然而,链长较短的果聚糖通常比链长的果聚糖(如菊粉)更容易喂养产丁酸菌。
补充菊粉虽然能够改变宿主的微生物群,但不会增加粪便丁酸水平。尽管这一结果似乎与谷物相反,但许多研究证明了补充菊粉在增加肠道短链脂肪酸生成方面的功效。
编辑
也就说,抗性淀粉和果聚糖(短链低聚果糖 和长链菊粉)在肠道中发酵时会产生丁酸盐。
对于抗性淀粉,似乎大多数研究都集中在 RS2 上。然而,在许多情况下,据报道 RS3 会产生更高水平的丁酸盐,对人类更健康。
抗性淀粉
煮熟后冷却:
土豆、红薯、米饭、意大利面、燕麦、豆类、豆类、全谷物。
原料:
青香蕉、马铃薯、马铃薯淀粉、青香蕉粉。
果聚糖
洋葱、菊苣、香蕉、朝鲜蓟、芦笋、大蒜、韭菜、西兰花、开心果和各种提取物。
由于人与人之间的常驻微生物存在显著差异,并且它们消化某些底物的能力不同,因此比较明智的选择是食用包含多种抗性淀粉和果聚糖的饮食。例如以马铃薯抗性淀粉、燕麦麸皮纤维或车前草种子或短链低聚半乳糖、长链低聚果糖和谷氨酰胺的混合物的形式短期补充,增加丁酸盐水平。
丁酸是不是越多越好?
丁酸并不总是越多越好,低浓度丁酸促进细胞增殖和生长,高浓度丁酸反而抑制细胞增殖和生长,增加肠道的通透性。
胃肠道不同部位对丁酸的耐受阈值也存在一定差异,胃和小肠对丁酸的耐受阈值低,结肠和盲肠耐受阈值高。
添加普通丁酸钠制剂过量(主要在肠道前端被吸收利用),反而造成肠道炎症、菌群失调。
更有意思的是,轻微炎症或者轻度溃疡部位添加丁酸盐可以促进肠道损伤的修复,在严重溃疡肠道部位添加,不利于溃疡的恢复,甚至加剧整个溃疡。
谷禾健康
骨关节炎
骨关节炎常被形容为关节“用久了、磨坏了”。但如果它只是软骨被动磨损,就很难解释:
为什么同龄人的关节状况差异明显?
为什么影像上的损伤程度与疼痛并不总是一致?
肥胖带来的影响,又是否仅仅来自额外的关节负重?
这些问题提示我们,骨关节炎并非单纯的软骨退化,而是涉及软骨、滑膜、骨和免疫代谢环境的全关节疾病。近年来,一条看似离膝关节很远的线索受到关注:肠道菌群。菌群及其代谢产物能够影响肠道屏障、全身代谢和免疫炎症状态,进而可能参与关节疼痛与组织变化。
从链球菌属、Roseburia、脱硫弧菌等菌群的关联研究,到“菌-代谢物-关节”通路的探索,肠道菌群与骨关节炎之间的联系正变得更具体和可参考。
本文将梳理肠道菌群、微生物代谢物与骨关节炎之间的研究进展,并讨论饮食、运动、体重管理和微生态调节可能带来的启示。
本文目录
01 认识骨关节炎
骨关节炎通常是什么感觉? 哪些人更容易发生骨关节炎? 为什么不能只用“磨损”,来解释骨关节炎?
02 从肠道菌群失衡到关节损伤:肠-关节轴如何运作?
骨关节炎患者的肠道菌群发生了什么变化
肠道屏障受损:肠道里炎症信号如何进入循环?
菌群代谢物:进入全身循环的化学信号
免疫系统:菌群信号如何放大炎症
关节组织:炎症最终作用在哪里?
疼痛:为什么“片子不严重,却很疼”?
细菌细胞外囊泡:正被关注的新型信号载体
03 骨关节炎与全身健康——不只是关节的问题
肥胖与代谢综合征:不仅是膝盖承受得更多
糖尿病:高血糖也会影响关节
衰老与肌少症:年龄增加的不只是关节磨损
睡眠、压力、焦虑、抑郁:越疼越睡不好
肝脏和肾脏:远离关节,也参与代谢网络
口腔健康:牙周炎也可能和骨关节炎有关?
04 骨关节炎的相关干预措施
饮食 | 益生菌 | 益生元| 天然活性物质 |
后生元和菌群代谢物 | FMT |
下一代微生态治疗 | 运动 | 睡眠和压力管理
05 结语
骨关节炎是最常见的慢性关节疾病之一,也是导致中老年人关节疼痛、活动受限和生活质量下降的重要原因。
2020年全球疾病负担相关数据估计,全球约有5.95亿人受到骨关节炎影响,约占全球人口的7.6%。
骨关节炎可以发生在多个关节,其中以膝、髋、手部关节较为常见。
编辑
骨关节炎通常是什么感觉?
疼痛,是骨关节炎最常见也最困扰患者的症状。
–有些人平时感觉不明显,一走多了就疼。
逛街时间长一点、出去旅行走一天,或者连续做了一些家务,膝盖开始酸痛,休息后又会缓解一些。
–有些人的痛主要出现在上下楼、蹲起或从椅子上站起来的时候。
平地走路还可以,但一遇到需要屈膝和发力的动作,关节就开始不舒服。
–有些人最明显的感觉不是疼,而是关节发紧、不灵活。
比如坐久以后站起来,最开始几步感觉膝盖有些僵,需要活动一会儿才能逐渐顺畅。
随着疾病进展,症状可能从偶尔出现逐渐变得频繁。原本只是走远路不舒服,后来可能变成上下楼困难、蹲不下去,甚至日常行走距离也开始受到限制。
部分人还会出现关节肿胀、发紧、活动时有摩擦感或响声。这也提示,骨关节炎是整个关节内部的结构和组织状态都可能受到影响。
不同关节受累时,日常感受也会有所不同。
如果是膝关节:影响行走、上下楼和蹲起;
如果是髋关节:影响走路和髋部活动;
如果是手部关节,则可能在拿东西、拧瓶盖、做精细动作时感觉疼痛或不方便。
哪些人更容易发生骨关节炎?
骨关节炎通常不是由某一个单独因素造成的。目前比较明确的相关因素包括年龄增长、既往关节损伤、肥胖、遗传易感性以及长期异常机械负荷等;炎症和代谢异常也越来越受到关注。
○ 年龄
年龄增长是骨关节炎最重要的风险背景之一。随年龄增加,软骨修复能力下降、细胞衰老及线粒体功能障碍增加,关节更易受损。
注:年龄增加的是风险,而不是一个必然结果。同样是六七十岁,有的人关节功能保持得很好,有的人则已经出现明显疼痛和活动障碍。
○ 性别与绝经状态
女性患骨关节炎的风险通常高于男性,尤其是膝和手骨关节炎;髋骨关节炎的男女差异较小。
○ 遗传与家族史
骨关节炎具有一定遗传倾向,髋、膝、手和脊柱骨关节炎均可有较高遗传度。与软骨、胶原和骨代谢相关的多个基因可能参与发病。
○ 既往关节损伤
曾经发生过明显的关节创伤,也会增加之后发生骨关节炎的风险。
尤其是膝关节受到损伤后,关节内部原有的结构和受力状态可能发生变化。随着时间推移,这种影响可能逐渐表现出来。
○ 长期异常负荷
关节需要承受负荷,但长期处于异常受力状态,同样可能增加关节组织损伤。
○ 肥胖
最容易理解的一点就是,体重增加意味着关节承受的机械负荷随之增加。
不过,近年来大量研究发现,肥胖常常同时伴随一些全身性的生物学变化(这一部分我们会在后面的章节单独展开)。
○ 遗传因素
即使年龄、体重和生活环境相似,不同人对关节损伤和退变的易感程度仍然可能不同。现有研究将遗传、年龄和环境因素的共同作用视为骨关节炎发生发展的重要背景。
○ 肠道菌群
部分骨关节炎危险因素本身也与肠道菌群变化有关。比如,肥胖、衰老、高脂低纤维饮食、代谢异常以及长期压力,都可能影响肠道菌群组成、肠屏障和微生物代谢功能。
这意味着,一些传统风险因素可能不仅通过机械负荷或局部损伤影响关节,也可能通过“肠道—代谢—免疫”这条路径参与骨关节炎。
注:这部分内容会在后面章节详细展开。
为什么不能只用磨损,来解释骨关节炎?
机械负荷和关节损伤是骨关节炎的重要因素,但关节并不是一块被动磨损的材料。随着疾病进展,变化会同时涉及软骨、滑膜、软骨下骨和关节周围组织。
当关节长期承受异常应力或受到损伤后,软骨细胞的代谢和修复能力会发生变化,细胞外基质的分解逐渐超过合成;同时,滑膜炎症和软骨下骨重塑又会进一步改变局部环境,使损伤持续放大。IL-1β、IL-6、TNF-α等炎症介质以及氧化应激,也会参与这一过程。
因此,骨关节炎是否持续进展,不仅取决于最初受到多大的机械损伤,也取决于关节长期处在什么样的炎症和代谢环境中。
近年来,研究者开始进一步关注一个可能影响这种环境的远端因素——肠道菌群。
肠道和膝关节相隔很远,一个负责消化吸收,一个负责支撑和运动,看起来似乎没有太大关系。
但随着研究深入,人们发现肠道中的大量微生物,会参与人体的营养代谢、免疫调节、肠道屏障维护,还能产生多种具有生物活性的代谢物。
目前所谓的“肠-关节轴”,更接近一个连续的生物学过程:肠道微生态改变以后,肠屏障、微生物代谢物和免疫调节随之变化,这些信号进入全身循环,再作用于滑膜、软骨、软骨下骨以及疼痛相关的神经系统。
骨关节炎患者的肠道菌群发生了什么变化
多项人体研究发现,骨关节炎患者与健康人之间存在菌群组成和功能上的差异。
Streptococcus:与关节疼痛和炎症相关
编辑
2019年一项发表在 Nature Communications 的人群研究分析了Rotterdam Study III中的 1,427名受试者,并结合独立队列进行验证。研究发现,肠道中链球菌属(Streptococcus)相对丰度越高,膝、髋关节骨关节炎患者的WOMAC疼痛评分越高,而这一关联与局部关节炎症有关。
这项研究的重要意义在于,它把肠道微生物特征与骨关节炎最直观的临床表现之一——关节疼痛联系了起来。
Bilophila、Desulfovibrio 增加, Roseburia 减少
编辑
2021年,发表在 Arthritis & Rheumatology 的研究一项基于1,388 名社区中老年人的研究进一步观察了症状性手骨关节炎与肠道菌群之间的关系。
与无症状手骨关节炎人群相比,症状性手骨关节炎患者肠道中Bilophila和Desulfovibrio相对丰度升高,而Roseburia降低。
其中,Roseburia是肠道中重要的产丁酸菌之一;而Bilophila、Desulfovibrio则常与胆汁酸环境、硫代谢以及炎症状态联系在一起。
在更高的分类层级上,还表现为Desulfovibrionaceae等增加、Lachnospiraceae减少,提示骨关节炎相关菌群变化可能同时涉及促炎环境和有益代谢功能的下降。
其中Roseburia是较典型的产丁酸菌,因此这种变化也提示,骨关节炎相关菌群失衡可能同时伴随短链脂肪酸等微生物功能的变化。
菌群变化还伴随着代谢功能改变
编辑
2023年发表在 EBioMedicine 的另一项研究则进一步把菌群组成与代谢功能结合起来分析。
发现队列共 1,359人,其中70人为症状性手骨关节炎;
宏基因组测序显示,骨关节炎人群中Bilophila wadsworthia、Hungatella hathewayi、Lactobacillus mucosae和Citrobacter koseri增加,Roseburia intestinalis、Bacteroides、Haemophilus属减少。
研究还发现,肠道微生物的色氨酸生物合成功能下降,同时血液中的吲哚类和犬尿氨酸相关代谢物也发生变化。
骨关节炎患者核心肠道菌群变化的临床试验总结
编辑
DOI: 10.3389/fendo.2026.1802845
综合这些较大规模的人群研究,可以看到一个值得关注的方向:骨关节炎伴随的肠道菌群变化,常涉及部分产短链脂肪酸菌减少,以及部分与炎症或条件致病特征相关的菌增加;与此同时,色氨酸等微生物代谢功能也可能发生改变。
值得继续追问的是:这些变化如何被转化成能够影响远端关节的生物学信号?
肠道屏障受损:肠道里炎症信号如何进入循环?
肠道菌群要影响远端关节,首先需要跨过一个非常重要的界面——肠道屏障。
紧密连接受损,肠道通透性升高
正常情况下,肠上皮细胞之间连接得很紧,ZO-1、Occludin、Claudins等紧密连接蛋白负责把这道边界守住。
菌群长期失衡时,这些连接可能变得松散,肠道通透性随之增加。原本应该被限制在肠腔里的细菌成分,就有机会进入血液循环。也就是常说的“肠漏”。
LPS:研究最多的细菌来源炎症信号之一
其中最受关注的是LPS(脂多糖),它主要来自革兰阴性菌的细胞外膜。
LPS进入循环后,可与LBP(脂多糖结合蛋白)、CD14等分子结合,并进一步激活 TLR4–MyD88–NF-κB 等先天免疫通路,同时促进 NLRP3炎症小体 活化。
编辑
doi.org/10.3390/pathogens15010062
这些信号最终可增加IL-1β、IL-6、TNF-α等炎症介质释放,使机体长期处在较低水平但持续存在的炎症环境中,也就是常说的慢性低度炎症。
对于骨关节炎来说,这一点尤其重要,因为肥胖、代谢综合征、衰老等常见骨关节炎危险因素,本身也经常伴随低度炎症。
骨关节炎人群中也发现了屏障异常的线索
骨关节炎患者血液和滑液中的LPS、LBP水平,与疼痛、结构损伤以及滑膜巨噬细胞活化有关;
在410名手骨关节炎患者组成的DIGICOD队列中,研究者还发现,LBP和Zonulin相关蛋白升高,提示部分患者的肠道屏障确实可能存在异常。
不过,细菌成分并不是肠道菌群影响宿主的唯一方式。事实上,大量微生物并不需要离开肠道,它们每天产生的各种代谢物,本身就能够进入循环并影响免疫和代谢系统。
短链脂肪酸、胆汁酸、色氨酸代谢物,接下来才是肠-关节轴里真正有意思的部分。
菌群代谢物:进入全身循环的化学信号
我们吃进去的食物,有一部分自己消化不了,只能交给肠道菌群继续加工。菌群一边吃,一边不断产生新的小分子,这些分子可以进入循环,参与免疫、代谢、神经调节甚至关节组织。菌群结构一旦改变,身体接收到的这套化学信号也会跟着变。
在骨关节炎研究里,目前最受关注的主要有三类:短链脂肪酸、胆汁酸、色氨酸代谢物。
短链脂肪酸:肠屏障、免疫平衡、软骨保护
前面提到的Roseburia、Faecalibacterium等菌之所以经常出现在骨关节炎研究里,一个重要原因就是它们参与产生短链脂肪酸(SCFAs),其中最常见的是乙酸、丙酸、丁酸。
这些小分子一头连着肠道,一头连着免疫系统。它们可以通过GPR41、GPR43、GPR109A 等受体传递信号,也可以通过抑制HDAC影响基因表达,因此既能帮助维持肠屏障,也会影响巨噬细胞和T细胞的状态。
骨关节炎研究中也出现了越来越直接的证据。
2026年一项动物和细胞研究,给骨关节炎大鼠补充丙酸后,发现疼痛、炎症和软骨损伤都有所减轻,肠屏障也得到改善;
在来源于人骨关节炎患者的软骨细胞中,丙酸还能够调节炎症和细胞外基质相关基因,增强自噬,并减少部分分解代谢和炎症性细胞死亡信号。
注:这类结果目前主要来自动物实验和细胞实验,还不能等同于“补充丙酸能够治疗人类骨关节炎”。它更重要的价值,是证明短链脂肪酸可能真正参与肠-关节轴的调节。
这提示,肠道菌群对关节的影响未必依赖细菌本身进入关节,菌群产生的代谢物和由此引发的免疫变化,就可能改变关节所处的微环境。
胆汁酸:菌群加工、参与免疫调节
胆汁酸最早被认识,是因为它能够帮助消化和吸收脂肪。
但进入肠道以后,初级胆汁酸还会被肠道菌群继续加工,生成一系列次级胆汁酸。
这些胆汁酸不仅参与消化,还可以通过FXR、TGR5等受体影响炎症、葡萄糖代谢、能量代谢以及GLP-1分泌。
因此,菌群结构变化也可能重新塑造胆汁酸谱。
菌群变化 → 胆汁酸组成改变 → 免疫细胞状态改变 → 关节炎症发生变化
2026年一项骨关节炎动物研究提供了一个很有代表性的例子。
研究发现,桑椹水提取物可以增加约氏乳杆菌(Lactobacillus johnsonii),这种菌又能促进HDCA生成,随后巨噬细胞极化发生改变,滑膜炎和软骨损伤减轻。
更进一步的菌株定植实验表明,单独给大鼠定植约氏乳杆菌,也能复制一部分效果。
注:HDCA(Hydroxy Desoxycholic Acid)是次级胆汁酸,由肠道微生物产生,参与脂肪消化和胆固醇代谢,实验显示,它能够影响巨噬细胞的炎症状态,减少促炎型巨噬细胞,并促进偏修复状态的巨噬细胞,从而减轻滑膜炎和软骨损伤。
编辑
doi.org/10.1016/j.phymed.2025.157679
色氨酸代谢:吲哚类物质、肠道屏障、免疫调节
色氨酸是我们从食物中获得的一种氨基酸,但进入肠道以后,它并不会只有一种去路。部分色氨酸会被肠道菌转化成吲哚及其衍生物,比如吲哚-3-丙酸(IPA)和吲哚-3-甲醛(IAld)。
菌群变化 – 代谢改变 – 宿主炎症
这些分子可以激活 AhR(芳香烃受体),进而影响肠屏障和免疫调节。在软骨细胞实验中,部分吲哚类代谢物能够抑制NF-κB相关炎症反应,同时减少基质降解酶,并维持聚集蛋白聚糖和Ⅱ型胶原等软骨成分。
前面那项2023年的大样本人群研究也发现,症状性手骨关节炎人群的菌群色氨酸生物合成功能下降,同时血浆中的多种色氨酸代谢物发生改变。
还有哪些代谢物值得关注?
其他菌群代谢物:GABA、硫化氢、TMAO等
部分研究正在关注GABA、硫化氢(H₂S)、TMAO、多胺以及尿石素等代谢物。
其中,动物和细胞实验提示,某些益生菌产生的 GABA可能具有软骨保护和抗炎作用;孟德尔随机化研究也发现,与微生物硫代谢和H₂S相关的部分代谢通路可能与骨关节炎风险有关。
注:这些研究目前的证据成熟度低于短链脂肪酸等领域,而且同一种代谢物的作用往往与产生部位、浓度和宿主状态有关。最好是看整个菌群代谢网络是否仍然处于稳定状态。
讲到这里,肠-关节轴其实已经走到了一个关键节点:无论是LPS、短链脂肪酸、胆汁酸还是色氨酸代谢物,最后都绕不开一个更核心的调节系统——免疫系统。
免疫系统:菌群信号如何放大炎症
LPS、短链脂肪酸、胆汁酸等微生物相关信号进入循环后,往往需要通过免疫系统,进一步影响关节局部的炎症状态。其中,巨噬细胞和T细胞是目前研究较多的两类免疫细胞。
巨噬细胞:炎症状态发生偏移
巨噬细胞广泛存在于滑膜等关节组织中,也是连接全身炎症与局部关节反应的重要细胞。
在实验研究中,LPS可通过 TLR4–NF-κB、NLRP3炎症小体等通路促进巨噬细胞释放IL-1β、IL-6、TNF-α等炎症因子,使其更偏向促炎状态;而丁酸等短链脂肪酸以及部分次级胆汁酸,则可能通过调节受体信号、表观遗传和细胞代谢,限制过度炎症反应。
编辑
研究中常用“M1型”和“M2型”描述巨噬细胞的促炎和修复倾向。虽然真实组织中的巨噬细胞状态远比这种二分法复杂,但在骨关节炎研究中,促炎型巨噬细胞增加、炎症消退和组织修复能力不足,被认为是滑膜炎持续存在的重要原因之一。
前面提到的HDCA就是一个例子。动物实验显示,肠道菌群产生的胆汁酸变化可以影响巨噬细胞极化,从而减轻滑膜炎和软骨损伤。这说明,菌群代谢变化与关节炎症之间,免疫细胞可能是重要的连接环节。
T细胞:Th17与Treg的平衡
T细胞同样参与骨关节炎相关炎症调节。其中研究较多的是 Th17细胞和调节性T细胞(Treg)。
Th17细胞可分泌IL-17等促炎因子,促进滑膜炎症和组织分解;Treg则通过IL-10等机制抑制过度免疫反应,帮助维持免疫耐受。肠道菌群及其代谢物能够影响这两类细胞的分化,因此菌群失衡有可能推动 Th17/Treg平衡向促炎方向偏移。
编辑
doi: 10.3389/fimmu.2023.1168818
2025年的一项孟德尔随机化研究进一步发现,部分肠道菌群与膝骨关节炎之间的关联,可能由特定CD4+ T细胞和活化Treg相关免疫特征介导。
注:这类结果仍需要更多研究验证,但它提示,菌群对骨关节炎的影响并不只停留在“炎症因子升高”这一层面,还可能涉及更具体的免疫细胞调节。
整体来看,肠道菌群更像是在改变机体的免疫背景:当促炎信号持续存在,而炎症消退和免疫调节能力下降时,原本局限于关节的损伤更容易被放大和维持。
关节组织:炎症最终作用在哪里?
经过肠屏障、循环和免疫系统之后,肠道来源的影响最终仍要落到关节本身。骨关节炎涉及的主要组织包括滑膜、关节软骨和软骨下骨,而且三者之间会相互影响。
滑膜:局部炎症的重要来源
骨关节炎并不是典型的自身免疫性关节炎,但不少患者同样存在不同程度的滑膜炎。
当滑膜中的巨噬细胞等免疫细胞被持续激活后,可释放IL-1β、IL-6、TNF-α等炎症介质,引起滑膜增厚、血管改变和炎症细胞浸润,并进一步加重疼痛和关节肿胀。
这些炎症因子还会作用于软骨细胞,因此滑膜炎并不只是一个伴随现象,而可能持续推动软骨退变。
软骨:合成减少,分解增加
正常情况下,软骨细胞负责维持Ⅱ型胶原和聚集蛋白聚糖等细胞外基质。骨关节炎发生后,这种平衡逐渐被打破。
炎症信号可促进 MMP-13、ADAMTS-5 等分解酶表达。其中,MMP-13主要参与Ⅱ型胶原降解,ADAMTS-5则可分解聚集蛋白聚糖。与此同时,氧化应激、线粒体功能异常和自噬障碍也会影响软骨细胞的生存和修复能力。
近年来,细胞焦亡、铁死亡等程序性细胞死亡机制也被纳入骨关节炎研究,但目前更多仍属于机制研究领域。
软骨下骨:异常重塑改变关节环境
软骨下骨并不是静止的支撑结构。骨关节炎过程中,它会经历持续的骨重塑,涉及破骨细胞、成骨细胞以及 RANK/RANKL/OPG、Wnt 等信号通路。
异常骨重塑不仅会改变骨密度和微结构,还会重新分配关节受到的机械应力,并通过血管、炎症因子和细胞信号继续影响上方软骨。
因此,肠-关节轴最终影响的并不是某一个单独组织,而是进入了骨关节炎本身已有的病理网络:滑膜炎症、软骨分解和软骨下骨重塑彼此促进,使关节逐渐失去原有稳态。
疼痛:为什么“片子不严重,却很疼”?
骨关节炎疼痛与影像学损伤并不总是完全一致。有的人X线改变明显,但疼痛并不突出;也有人影像学改变有限,却长期存在明显疼痛。原因之一,就是骨关节炎疼痛不仅取决于结构损伤,还受到神经系统敏感性的影响。
外周敏化:关节里的痛觉神经变得更敏感
软骨本身几乎没有神经,但滑膜、关节囊、韧带和软骨下骨都存在丰富的感觉神经。
当IL-1β、IL-6、TNF-α、NGF、PGE2等炎症和疼痛相关信号长期升高时,可降低感觉神经末梢的激活阈值,并影响 TRPV1、CGRP 等疼痛相关通路,使原本正常或轻微的刺激更容易被感知为疼痛,这被称为外周敏化。
因此,持续的滑膜炎和局部炎症不仅造成组织损伤,也会直接改变痛觉系统。
中枢敏化:疼痛系统本身发生改变
如果疼痛信号长期、反复进入脊髓和大脑,中枢神经系统也可能逐渐发生适应性改变。
脊髓小胶质细胞活化、p38/MAPK以及CX3CL1/CX3CR1等神经免疫通路,都被认为与骨关节炎慢性疼痛和中枢敏化有关。此时,即使关节局部刺激并没有同步加重,患者仍可能表现出疼痛阈值下降、疼痛范围扩大,甚至对轻微刺激产生明显不适。
肠道菌群可能通过全身炎症、微生物代谢物和神经免疫信号参与这一过程,但目前这部分证据仍以动物和机制研究为主,人体中的直接因果关系尚未完全建立。
这也解释了为什么骨关节炎疼痛不能只看软骨“磨损了多少”。结构损伤、炎症状态和神经敏化共同决定了一个人最终感受到的疼痛程度。
细菌细胞外囊泡:正被关注的新型信号载体
除了LPS和可溶性代谢物,近年来研究者还开始关注另一类微生物来源信号——细菌细胞外囊泡(bacterial extracellular vesicles,BEVs)。
细菌细胞外囊泡是什么?
细菌细胞外囊泡(BEVs) 是细菌释放的纳米级膜性小囊泡,通常由脂质膜包裹,其中可以携带蛋白质、脂质、核酸、代谢物,以及LPS、肽聚糖等细菌成分。
它们的重要特点在于:细菌本身不需要进入关节,部分细菌来源的分子仍可能通过囊泡被运输到远端组织。
编辑
DOI: 10.1080/19490976.2025.2489069
已有研究提示,部分BEVs能够跨越肠屏障进入循环,并影响免疫细胞、炎症通路和远端器官。因此,它们被认为可能是肠道菌群与宿主组织之间一种新的信息传递方式。
不同来源的BEVs,作用可能完全不同
BEVs并不是一种性质单一的物质。
来自革兰阴性菌的囊泡可能携带LPS等促炎成分,激活TLR4等先天免疫通路;
而某些共生菌或益生菌来源的BEVs,则可能具有调节屏障、免疫和代谢的作用。
编辑
DOI: 10.1080/19490976.2025.2489069
近年来,还有研究尝试利用工程化细菌囊泡进行药物或生物活性分子的靶向递送。
注:与LPS、短链脂肪酸等研究相比,BEVs在骨关节炎中的证据仍处于较早阶段。目前更适合把它看作一个值得关注的新机制,而不是已经得到临床证实的骨关节炎致病因素。
到这里,肠-关节轴的基本路径已经比较清楚:肠道菌群可以通过屏障功能、微生物代谢物和免疫调节,影响滑膜、软骨、软骨下骨以及疼痛相关通路。
但这些机制并不会在每个人身上以同样的方式出现。有人更突出的是肥胖和代谢异常,有人以滑膜炎症为主,也有人结构损伤并不严重,却表现出明显的疼痛敏化。也正因为如此,同样是骨关节炎,不同人的症状、进展速度和治疗反应往往差别很大。
在临床和人群研究中,骨关节炎经常与肥胖、糖尿病、心血管代谢异常、肌少症、睡眠障碍以及焦虑、抑郁等问题同时出现。它们有些共享年龄、体重和生活方式等风险因素,有些则可能通过慢性炎症、代谢异常和疼痛形成更复杂的相互影响。
肥胖与代谢综合征:不仅是膝盖承受得更多
|瘦素/脂肪因子;IL-6、TNF-α;胰岛素抵抗;丙酸、吲哚
肥胖与膝骨关节炎之间的关系最容易理解——体重越大,行走、上下楼时膝关节承受的机械负荷越高。
但有意思的是,肥胖与手骨关节炎同样存在关联。手指显然不会因为体重增加而多承受几十公斤重量,这提示肥胖对骨关节炎的影响还有机械负荷之外的部分。
脂肪组织本身具有活跃的内分泌和免疫功能。肥胖时,脂肪组织可释放更多IL-6、TNF-α、瘦素等信号,并伴随胰岛素抵抗、血脂异常和慢性低度炎症。
编辑
DOI 10.3389/fimmu.2026.1892592
瘦素等信号还可以作用于滑膜和软骨细胞,通过JAK/STAT、NF-κB等通路促进炎症和基质分解;游离脂肪酸和脂质代谢异常也可能增加氧化应激,进一步改变关节局部环境。
肠道菌群也可能参与其中。
一项针对肥胖并伴有手、膝骨关节炎人群的粪便代谢组研究发现,与肥胖但无骨关节炎的对照相比,骨关节炎组的丙酸水平降低,二肽和三肽增加,同时吲哚及其他色氨酸代谢物发生改变,并伴有氨基酸代谢、脂肪酸利用和白三烯代谢异常。
因此,高血压、腹型肥胖、高血糖和血脂异常聚集形成的代谢综合征,与骨关节炎之间的联系并不只是体重增加。对这部分患者来说,减重的意义也不仅是给膝盖减负,同时还可能改善全身代谢和炎症环境。
糖尿病:高血糖也会影响关节
|AGEs–RAGE;SCFA、色氨酸;胆汁酸–FXR/TGR5–GLP-1
糖尿病与骨关节炎经常出现在同一个人身上,一部分原因当然来自肥胖、年龄和运动不足等共同因素,但高血糖本身也可能影响关节组织。
长期血糖升高会促进晚期糖基化终产物(AGEs)形成。AGEs可在胶原等长寿命蛋白中积累,使组织弹性下降,并通过其受体RAGE促进氧化应激和炎症反应。与此同时,胰岛素抵抗和糖脂代谢紊乱也可能改变软骨细胞和滑膜细胞的代谢状态。
编辑
doi: 10.1017/erm.2024.7
肠道菌群可能进一步参与这种过程。代谢性骨关节炎研究特别关注短链脂肪酸、色氨酸代谢物以及胆汁酸—FXR/TGR5—GLP-1通路:这些微生物相关代谢信号既参与葡萄糖和脂质代谢,也会影响肠屏障、免疫和关节炎症。
反过来,骨关节炎带来的疼痛和活动减少,又可能使体重、血糖控制进一步恶化。所以在实际生活中,骨关节炎和糖尿病常常不是两个互不相关的问题,而可能形成“疼痛—少动—代谢变差—关节负担进一步增加”的循环。
衰老与肌少症:年龄增加的不只是关节磨损
|SASP、炎症、免疫衰老;Th17/Treg
骨关节炎随年龄增加而明显增多,但衰老带来的变化远不止软骨变薄。
随着年龄增长,软骨细胞的线粒体功能、自噬和修复能力逐渐下降;部分细胞进入衰老状态后,会持续释放IL-6、基质降解酶等炎症和分解信号,这类现象被称为 SASP(衰老相关分泌表型)。
与此同时,免疫系统也会出现免疫衰老(immunosenescence)和 炎症性衰老(inflammaging)。
现有研究提出,肠道菌群失衡和屏障功能下降可能持续提供低水平炎症刺激,进一步放大这种“代谢炎症-免疫衰老”状态,并影响Th17/Treg平衡和巨噬细胞功能。
编辑
很多老年人还存在肌少症(肌肉量和肌力下降)。股四头肌等关节周围肌肉力量不足,会降低关节稳定性,使行走和站立时的负荷分配更加不利;疼痛又会让人更少活动,进一步加快肌肉流失。
睡眠、压力、焦虑、抑郁:越疼越睡不好
|HPA轴;LPS–TLR4–NLRP3;IL-1β/TNF-α/IL-6
慢性骨关节炎患者中,睡眠问题非常常见。
疼痛可以让人难以入睡、夜间频繁醒来;而睡眠不足又会降低疼痛阈值,使第二天对疼痛更加敏感。时间一长,很容易形成“疼痛增加-睡眠变差-痛觉敏感-疼痛进一步增加” 的循环。
长期压力则可持续激活 HPA轴和交感神经系统,改变皮质醇和儿茶酚胺水平,并影响肠道运动、屏障功能和菌群组成。
在动物慢性应激模型中,还观察到 Alloprevotella增加,而Parasutterella、Parabacteroides等减少。这些结果还不能直接套用到骨关节炎患者身上,但说明心理压力确实可能伴随具体的微生态变化。
功能变化:压力导致肠屏障受损后,LPS入血增加,可进一步激活TLR4和NLRP3炎症小体,促进IL-1β、TNF-α、IL-6等炎症因子释放,并参与滑膜炎和疼痛敏化。
编辑
doi: 10.3389/fmicb.2026.1851267
焦虑和抑郁也有类似的双向关系。长期疼痛会影响情绪和生活质量,而持续的压力、焦虑和睡眠不足又可能通过神经、内分泌和免疫系统增强痛觉敏化。
慢性疼痛本身就是关节、免疫系统和神经系统共同参与的生理过程。也因此,有些人的影像学改变并不严重,却可能感受到非常明显的疼痛。
肝脏和肾脏:远离关节,也参与代谢网络
| C. bolteae–GUDCA–FXR–GLP-1;
| 吲哚硫酸、FGF23、维生素D、MMP-13/9
肝脏和肾脏虽然离关节很远,却决定着人体大量代谢物和炎症信号的水平。
肝脏首先连接着脂质、铁和胆汁酸代谢。
研究发现,骨关节炎患者肠道中Clostridium bolteae 相对丰度降低,并与血浆 GUDCA(甘氨熊去氧胆酸) 水平呈正相关;在小鼠实验中补充该菌,可提高UDCA/GUDCA相关胆汁酸和GLP-1水平,并减缓骨关节炎进展。
这说明肝脏产生的胆汁酸可能通过 菌群—胆汁酸—FXR/GLP-1等信号共同影响代谢和关节环境。
另一条值得关注的是铁代谢。肝脏调节的铁调素—铁输出蛋白轴(hepcidin–ferroportin)异常可能增加铁蓄积和脂质过氧化,而 GPX4 等抗氧化系统失衡又与软骨细胞铁死亡有关。不过,这部分目前仍主要属于机制和动物研究。
肾脏则与骨矿物质和尿毒素代谢密切相关。慢性肾病时,FGF23升高、维生素D代谢异常可能影响Wnt/β-catenin等通路,并促进MMP-13、MMP-9等软骨基质降解酶表达;另一方面,肠道菌群参与产生的吲哚硫酸等尿毒素无法及时清除,也会增加氧化应激和炎症。
注:目前肝肾疾病与骨关节炎之间的很多联系仍以相关性和机制研究为主。
口腔健康:牙周炎也可能和骨关节炎有关
|Bacteroidota、Fusobacteriota、LPS生物合成;MAPK11
除了肠道,口腔也是人体重要的微生态系统。
牙周炎是一种慢性炎症性疾病。牙周组织长期发炎时,局部细菌成分和炎症介质可能进入循环,增加全身炎症负荷;与此同时,大量口腔微生物还会随着吞咽进入胃肠道。
近年来,研究人员开始关注“口腔-肠道-关节轴”。
2026年的一项多组学病例对照研究同时分析了骨关节炎患者的口咽菌群、肠道菌群和软骨组织。
编辑
结果显示,骨关节炎组口腔中拟杆菌门和梭杆菌门等相对富集;肠道中观察到瘤胃球菌科(Ruminococcaceae)和Subdoligranulum 等增加。部分肠道微生物还与软骨中的炎症相关基因及细胞外基质重塑蛋白存在相关性。
此外,一些口腔致病菌也提供了机制线索。例如牙龈卟啉单胞菌(Porphyromonas gingivalis) 的成分可进入循环或影响肠道免疫环境;具核梭杆菌(Fusobacterium nucleatum) 产生的细胞外囊泡,也被研究发现能够影响肠道免疫稳态。这些结果为“口腔-肠道-关节轴”提供了一定的生物学依据。
注:这类研究目前样本量仍较小,而且主要属于横断面观察,因此说明口腔菌群和骨关节炎存在关联。它更重要的意义在于提醒我们:影响关节的微生态环境,可能并不只来自肠道。
目前证据最可靠的,仍然是饮食、减重、运动、睡眠和代谢管理;益生元、益生菌以及部分天然活性物已经积累了一定的人体或动物证据;而短链脂肪酸、胆汁酸、FMT、工程菌、噬菌体和细菌细胞外囊泡等,则更多处在机制验证和转化研究阶段。
饮食
最基础,也最容易长期影响菌群
如果要长期改变肠道菌群,饮食几乎是最需要考虑的因素。对大多数人来说,决定菌群每天吃什么的,是一日三餐。
饮食干预总体有效,限能量饮食证据明确
【随机试验Meta分析】
2025年一项系统综述和Meta分析进一步汇总了9项随机对照试验,共纳入898名骨关节炎患者,涉及限能量饮食、地中海饮食、低脂饮食、抗炎饮食、低碳水饮食和植物性饮食等多种模式。总体来看,饮食干预能够改善骨关节炎患者的疼痛和身体功能,并降低体重;其中证据最明确的是限能量饮食,在疼痛、功能和减重方面均表现出显著改善。
编辑
doi.org/10.3390/nu17111872
地中海饮食依从性高的人,疼痛更轻、功能更好
富含蔬菜、水果、全谷物、豆类、坚果、鱼类和橄榄油的地中海式饮食,长期以来被认为有利于心血管和代谢健康。
从肠道菌群角度看,这类饮食同时提供较丰富的膳食纤维、多酚和不饱和脂肪酸,因此也更有利于形成较多样的微生物代谢环境。
【观察性研究】
2026年一项横断面研究纳入了103名原发性膝骨关节炎患者,采用MEDAS评分评估地中海饮食依从性。结果发现,地中海饮食依从性越高,患者的疼痛程度越低,关节功能也越好;在校正部分临床和生活方式因素后,这种关联仍然存在。
饮食的影响可能还与其整体炎症潜力有关
【使用RCT的基线数据】
一项研究发表于2025年,分析了FEAST试验中 144名有症状膝骨关节炎患者的基线数据,用膳食炎症指数(DII)和能量校正后的E-DII评估饮食整体偏促炎还是抗炎。
结果发现,在男性患者中,饮食越偏促炎,能量/活力水平越低,而且校正年龄和BMI后仍存在关联。
少一点高脂、高糖和高度加工食品
长期高脂、高糖、低纤维的饮食模式,在动物和人体研究中都与菌群失衡、肠屏障异常和代谢性炎症有关。减少含糖饮料、精制碳水、反复油炸食品和高度加工食品,不仅是为了体重,也可能减少促炎代谢环境对关节的持续影响。
益生菌
有人体试验,但效果高度依赖菌株
益生菌可以通过竞争性抑制潜在致病菌、改善肠屏障、降低LPS负荷,并调节短链脂肪酸和免疫反应来影响骨关节炎。
人体试验:部分益生菌可改善疼痛和炎症指标
【随机试验Meta分析】
2026年一项Meta分析汇总了8项膝骨关节炎随机对照试验。总体来看,益生菌在VAS疼痛、WOMAC疼痛和僵硬以及血清CRP方面表现出一定改善,但身体功能结果并不完全一致,而且不同菌株、干预时间和患者基础炎症状态造成了较大的研究异质性。
其中比较有代表性的研究包括:
干酪乳杆菌代田株(Lactobacillus casei Shirota)
2017年一项双盲安慰剂对照试验纳入537名膝OA患者,持续6个月,益生菌组WOMAC、VAS疼痛和hs-CRP均优于安慰剂组。
多菌株益生菌
【随机对照试验】
2024年一项纳入147名膝OA患者的双盲试验,使用含 8株乳酸菌和双歧杆菌的Vivomix多菌株益生菌,持续12周。结果显示,益生菌组的行走时疼痛、WOMAC评分和OA严重程度下降,步行速度、握力和平衡能力改善;同时血浆 Zonulin和CRP降低,提示肠屏障通透性和全身炎症可能参与其中。
多菌株益生菌Vivomix (8 strains)包括:
Streptococcus thermophilus DSM 24731,
Bifidobacterium longumDSM 24736,
B. breve DSM 24732/24737,
Lactobacillus spp. DSM 24735/24730/24733,
L. delbrueckii subsp. bulgaricus DSM 24734
【动物实验+人软骨细胞】
研究发现,嗜热链球菌(Streptococcus thermophilus)和戊糖乳杆菌(Lactobacillus pentosus)处理后,小鼠体内GABA水平升高,关节软骨分解和炎症减轻;GABA在人骨关节炎软骨细胞中也表现出一定软骨保护作用。
谷禾搜索多篇相关文献,整理的一些与骨关节炎干预相关的证据较充分的益生菌如下:
编辑
益生元
改变菌群的“营养环境”
益生元是利用饮食底物,让原有菌群中的某些成员获得生长优势。常见的有菊粉、低聚果糖(FOS)、低聚半乳糖以及抗性淀粉等。
低聚果糖:增加双歧杆菌,炎症和软骨损伤减轻
【动物实验】
2018年的研究发现,高脂饮食肥胖小鼠中有益的双歧杆菌减少,而补充低聚果糖后,尤其是 Bifidobacterium pseudolongum明显增加。
与此同时,结肠炎症、循环炎症和滑膜巨噬细胞浸润下降,OA软骨损伤也明显减轻。
注:低聚果糖并没有明显降低这些小鼠的体重,提示它的保护作用不能完全用“减重”解释。
菊粉和低聚果糖:改善功能,影响丁酸和GLP-1
【随机对照试验】
2024年一项研究纳入54名同时患有肥胖和膝OA的成年人,每天补充16 g低聚果糖强化菊粉,持续6个月。与安慰剂相比,益生元组在起立行走、40米快速步行和握力等身体功能指标上表现更好,躯干脂肪量也下降;膝痛呈改善趋势。
【随机对照试验】
一项117名膝OA患者的试验中,每天补充 20g 菊粉6 周后,疼痛较安慰剂下降,同时压力痛阈和时间总和等疼痛敏化指标有所改善。研究还发现菊粉组的丁酸和GLP-1升高。
注意:高剂量可发酵纤维也容易造成腹胀、排气增多等问题,通常需要逐渐增加,而不是突然大量补充。
天然活性物质
可能先经过肠道,再到关节
姜黄素、白藜芦醇、维生素D等天然活性物质,过去更多是从抗炎、抗氧化角度讨论。
一个很有意思的问题:很多植物活性成分口服后的全身生物利用度并不高,大量成分反而会停留在肠道,并接受肠道菌群进一步代谢。因此,它们的部分作用可能首先发生在微生态层面。
编辑
DOI 10.3389/fimmu.2023.1323233
★姜黄素:保护软骨,减轻炎症并改善关节症状
姜黄素在动物研究中可改善肠屏障相关蛋白,并抑制 LPS–TLR4–MyD88–NF-κB 信号以及IL-1β、TNF-α等炎症因子。
【临床研究】
临床研究发现,姜黄素制剂可改善膝骨关节炎患者的疼痛和功能。尤其是一项为期 6周的研究显示,姜黄素纳米胶束可显著改善膝OA相关症状。
姜黄素治疗膝骨性关节炎:一系列临床干预措施
编辑
DOI 10.3389/fimmu.2023.1323233
★白藜芦醇:调节肠道菌群,减轻炎症反应
白藜芦醇则可能同时影响菌群、氧化应激和软骨细胞 Nrf2、NF-κB 等通路。
【动物实验】
研究发现,补充白藜芦醇可改变肠道菌群组成,增加Akkermansia、Ruminococcaceae等有益菌群,并改善肠屏障功能。与此同时,全身炎症、脂肪堆积和高脂饮食引起的肠道菌群失衡均有所减轻。
★辣椒素:缓解关节疼痛,抑制炎症反应
多项临床研究发现,局部外用或关节腔内给予辣椒素,可减轻骨关节炎相关疼痛。其镇痛作用主要与调节痛觉受体 TRPV1 有关,因此辣椒素被认为具有改善骨关节炎疼痛症状的潜力。
辣椒素除直接缓解疼痛外,还可能通过抑制炎症反应减轻骨关节炎相关症状。
【细胞与动物研究】
实验研究显示,辣椒素可下调 COX-2、NF-κB等炎症相关信号,并减少 TNF-α、IL-1β和IL-6 等促炎因子的表达;动物实验中,辣椒素制剂也表现出一定的抗炎和镇痛作用。
★桑葚水提物:提高次级胆汁酸,减轻滑膜炎
我们前面章节已经讲过,一项研究发现,桑葚水提物可选择性增加约氏乳杆菌,进而提高次级胆汁酸 HDCA。
HDCA可以抑制促炎型巨噬细胞状态、促进偏修复型巨噬细胞,从而减轻滑膜炎和软骨退变。
★维生素D:缺乏与OA严重程度相关,补充改善
较低的维生素D水平与更严重的膝骨关节炎症状和结构异常相关。
【临床观察】
2025年的一项研究纳入 171名40–75岁的膝骨关节炎患者,其中63.7%的患者维生素D水平低于30 ng/mL。与维生素D水平正常者相比,维生素D不足或缺乏患者的VAS疼痛评分和WOMAC评分更高、KOOS评分更差,同时更常出现滑膜炎、软骨厚度减少及骨炎等表现。
研究显示,部分研究观察到维生素D补充对膝OA患者具有一定的症状改善作用。
【维生素D2】
例如,一项纳入 175名维生素D不足的膝OA患者的研究中,每周补充40,000 IU维生素D2、持续6个月后,患者的VAS疼痛评分、生活质量和多项身体活动能力均得到改善。
【维生素D3】
维生素D3可能通过调节炎症反应改善OA症状。
一项纳入80名膝骨关节炎患者的研究中,每日补充 4000 IU维生素D3、持续3个月 后,患者的VAS疼痛评分及WOMAC疼痛、僵硬和功能评分均显著改善,同时部分促炎因子水平下降。
维生素D3长期随机对照研究结果并不一致。
一项纳入413名患者、持续2年的研究发现,每月补充 50,000 IU维生素D3 虽显著提高血清维生素D水平,但未显著改善膝关节疼痛或减少软骨体积丢失。
★维生素K:维持软骨矿化稳态
维生素K的潜在获益可能主要体现在原本维生素K不足的人群。
【维生素K1:随机对照试验】
一项纳入378名60–80岁成年人、持续3年 的随机双盲试验中,每日补充 500 μg维生素K1,整体上并未显著降低手部OA、骨赘或关节间隙狭窄的发生。但在基线维生素K不足、随后恢复至充足水平的人群中,关节间隙狭窄的发生率降低约47%。
口服K2可能有助于维持软骨基质完整性。
【维生素K2:动物实验】
2026年的研究发现,在MIA诱导的膝OA大鼠中,每日口服 8 μg维生素K2、持续28天 后,治疗组的软骨组织学损伤明显减轻,Mankin评分由对照组的 11.10降至4.25,同时Ⅱ型胶原保存增加、MMP-13表达降低。
谷禾搜索多篇相关文献,整理的其他和OA干预相关的生物活性物质/天然提取物如下:
编辑
后生元和菌群代谢物
不一定要补活菌
严格来说,现代“后生元”的定义更偏向失活微生物及其组分,短链脂肪酸、胆汁酸等更准确地说属于微生物代谢物。
但在骨关节炎干预中,两者的逻辑非常接近:不一定依赖活菌长期定植,而是直接利用微生物功能。
前文已经详细介绍了丙酸、胆汁酸、GABA、色氨酸代谢物等菌群代谢物在骨关节炎中的作用机制,这里不再展开。 从干预角度看,它们更重要的意义在于:未来可能针对特定代谢物及其受体进行更精准的调节。
FMT
粪菌移植,重建整个菌群
粪菌移植(FMT)是彻底的菌群干预方式之一,把一个完整的微生物群落转移给受体。
【人体供体+动物实验】
2020年的一项研究将健康人、单纯膝OA患者,以及OA合并代谢综合征患者的粪便菌群分别移植给无菌小鼠。
结果发现,接受OA合并代谢综合征人群菌群的小鼠,在关节损伤后出现了更严重的OA,同时肠道通透性和 IL-1β、IL-6、MIP-1α 等全身炎症指标升高。
其中,Fusobacterium、Faecalibacterium增加以及Ruminococcaceae减少,还与OA严重程度和炎症指标存在相关性。
2024年的另一项动物研究则从相反方向证明了这一点:将相对抗骨关节炎的MRL小鼠菌群移植到普通小鼠后,在特定时间窗口内可明显降低OA组织学损伤、滑膜炎和骨赘形成。
注:FMT远比补充某一种益生菌复杂,目前还需要更多人体临床证据支持用FMT治疗OA。
下一代微生态治疗
更精准的设计
下一代益生菌:寻找与功能相关的菌株
2025年一项OA人群研究发现,OA患者中普拉梭菌(Faecalibacterium prausnitzii)和Bacteroides plebeius减少。普拉梭菌是典型的产丁酸菌,也被视为潜在的“下一代益生菌”候选。
工程菌:让细菌在肠道里定向生产药物
合成生物学还可以对细菌进行改造,使其在肠道中持续产生短链脂肪酸、抗炎分子或屏障保护因子。
相比直接反复服药,这种思路理论上可以在肠道局部持续工作。但对于OA来说,目前仍然属于概念和前临床阶段。
噬菌体:精准“删菌”
噬菌体能够感染特定细菌,因此理论上可以针对某些有害菌株进行更精准的清除,而不像抗生素那样大范围破坏整个菌群。但对于OA,目前处于长远方向。
细菌细胞外囊泡
细菌细胞外囊泡(BEVs)可以携带蛋白质、脂质、核酸和代谢物,而且体积只有几十到几百纳米。未来可以筛选有益菌来源BEVs,或者进行工程化改造,用它们递送抗炎或软骨保护分子。
运动
作用肌肉和关节,也可能是肠道
运动本身就是OA管理中证据成熟的一部分:它能够增强关节周围肌力、改善稳定性和功能,并帮助控制体重。
运动可以降低肠源性LPS
【动物实验】
在高脂饮食诱导的肥胖型OA小鼠中,中等程度的自主跑轮运动提高了菌群多样性,并部分逆转高脂饮食造成的菌群变化。
例如运动后Prevotellaceae、Bifidobacteriaceae等增加,而与高脂饮食和内毒素环境相关的部分菌群下降。
更关键的是,运动后血液和滑液中的 LPS下降,同时TLR4和MMP-13表达降低,软骨损伤也减轻。
力量训练:运动干预中证据充分的方法之一
【Meta分析】
2024年一项系统综述和Meta分析显示,力量/抗阻训练能够显著改善膝OA患者的疼痛、关节僵硬和身体功能。
另一项涵盖27项研究、1712名OA患者的Meta分析也发现,抗阻训练可同时改善疼痛、肌力和功能。
对膝OA来说,重点通常是加强股四头肌、臀肌和其他下肢稳定肌群。肌力提高后,可以改善膝关节稳定性和负荷分配,从而减轻活动时的不适。
八段锦:改善疼痛、僵硬、身体功能和总评分
【Meta分析】
2025年一项Meta分析纳入12项随机对照试验、共846名膝OA患者,结果显示,八段锦可改善 WOMAC疼痛、僵硬、身体功能和总评分。
不过,纳入研究之间异质性较高,部分研究方法学质量有限,因此更适合作为OA的辅助运动方式,而不是替代常规治疗。
八段锦同时结合缓慢动作、呼吸调节和注意力训练,因此除了改善关节功能,也具有一定的身心调节特点。
太极:疼痛、僵硬和身体功能改善
【临床RCT证据】
太极也有较多临床证据。 2025年一项纳入13项随机对照试验、701名膝OA患者的Meta分析发现,太极可改善疼痛、关节僵硬和身体功能。太极同时包含低冲击运动、重心转移、平衡训练和呼吸调节,因此既属于运动干预,也兼具一定的身心调节特点。
针对太极、瑜伽和八段锦等身心运动的Meta分析显示,这类干预除改善疼痛和功能外,还可改善心理健康和抑郁症状。
睡眠和压力管理
切断疼痛循环
失眠认知行为疗法:睡眠改善
【随机对照试验】
一项100名同时患有膝OA和失眠患者的随机试验发现,经过8次失眠认知行为治疗(CBT-I)后,夜间清醒时间明显改善;而睡眠改善程度还能够预测之后疼痛的下降。
疼痛应对技能训练:学习放松,疼痛改善
【随机对照试验】
一项纳入256名膝或髋OA慢性疼痛患者的研究发现,经过10次疼痛应对技能训练(PCST)后,患者的疼痛强度、身体功能、心理困扰和自我效能均有所改善。PCST主要训练患者识别灾难化思维、调整活动节奏,并学习放松和疼痛应对策略。
正念:有一定的长期疼痛获益
【试点随机试验】
2022年一项40名膝或髋OA患者的研究评估了8周正念减压(MBSR)。3个月时WOMAC疼痛和功能并未显示明显优势,但6个月时VAS疼痛下降更多,提示正念可能有一定长期疼痛获益,不过目前证据仍较初步。
压力管理并不是简单地保持心情好。
对于长期疼痛、压力大或疼痛灾难化明显的人,CBT/PCST、正念练习、呼吸和放松训练等结构化方法,更有证据基础。
关于肠道菌群与骨关节炎,科学界已经从最初的发现两者有关,逐渐走到了肠屏障、LPS、短链脂肪酸、胆汁酸、色氨酸代谢、免疫调节乃至细菌细胞外囊泡等更具体的机制层面。
机械负荷、衰老、肥胖、代谢异常、炎症、肌力和疼痛敏化仍然共同决定着疾病的发展,而肠道菌群更可能是其中一个可以调节的环节。
下一代益生菌、定义菌群、工程菌、微生物代谢物和BEVs,也可能让基于菌群的调节从宽泛概念逐渐走向精准治疗。
未来值得期待的,是逐渐走向“菌群—代谢物—免疫—临床表型”联合分析,并通过更大规模的人体研究和随机试验,找出哪些骨关节炎患者更适合微生态干预,以及应该干预哪一个环节。
肠道菌群检测在其中,可以与代谢组、炎症指标、体重和血糖血脂等临床信息结合起来看,帮助我们观察功能潜力及干预前后的变化趋势。
与其把关节当成一件会磨损的零件,不如把它看作处在全身炎症与代谢网络中的一个器官,而这张网,有一部分可以由你的饮食、菌群、运动和作息去改变。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Wei J, Zhang C, Zhang Y, Zhang W, Doherty M, Yang T, Zhai G, Obotiba AD, Lyu H, Zeng C, Lei G. Association Between Gut Microbiota and Symptomatic Hand Osteoarthritis: Data From the Xiangya Osteoarthritis Study. Arthritis Rheumatol. 2021 Sep;73(9):1656-1662.
Seow SR, Mat S, Ahmad Azam A, Rajab NF, Safinar Ismail I, Singh DKA, Shahar S, Tan MP, Berenbaum F. Impact of diabetes mellitus on osteoarthritis: a scoping review on biomarkers. Expert Rev Mol Med. 2024 Apr 12;26:e8.
Chowdhury T, Bellamkonda A, Gousy N, Deb Roy P. The Association Between Diabetes Mellitus and Osteoarthritis: Does Diabetes Mellitus Play a Role in the Severity of Pain in Osteoarthritis? Cureus. 2022 Jan 20;14(1):e21449.
Boer, C.G., Radjabzadeh, D., Medina-Gomez, C. et al. Intestinal microbiome composition and its relation to joint pain and inflammation. Nat Commun 10, 4881 (2019).
Ghoullam G, El Binoune I, Amine B, El Moubarik I, Alaoui Kadiri Z, Zemrani S, Rostom S, Bahiri R. Mediterranean Diet Adherence and Its Association With Pain and Functional Status in Knee Osteoarthritis: A Cross-Sectional Study. Cureus. 2026 Jun 12;18(6):e110743.
Kasprzyk N, Nandy S, Grygiel-Górniak B. Diet in Knee Osteoarthritis-Myths and Facts. Nutrients. 2025 May 30;17(11):1872.
Asadi S, Grafenauer S, Burley CV, Fitzgerald C, Humburg P, Parmenter BJ. The effectiveness of dietary intervention in osteoarthritis management: a systematic review and meta-analysis of randomized clinical trials. Eur J Clin Nutr. 2025 Oct;79(10):959-971.
Fladerer-Grollitsch JP, Klein T, Kompek A, Steiner N, Menzel D, Schön C. Effects of cartilage-supporting nutritional supplementation on knee osteoarthritis symptoms and quality of life in a 12-week randomized double-blind placebo-controlled pilot study. Sci Rep. 2025 Jul 15;15(1):25625.
Prinz E, Schlupp L, Dyson G, Barrett M, Szymczak A, Velasco C, Izda V, Dunn CM, Jeffries MA. OA susceptibility in mice is partially mediated by the gut microbiome, is transferrable via microbiome transplantation and is associated with immunophenotype changes. Ann Rheum Dis. 2024 Feb 15;83(3):382-393.
Kouraki A, Franks S, Vijay A, Kurien T, Taylor MA, Smith SL, Smith B, Kelly A, Valdes AM. Effect of Prebiotic Supplementation With and Without Physiotherapy on Pain and Pain Sensitivity in People with Knee Osteoarthritis. Nutrients. 2026 Feb 24;18(5):714.
Karim A, Khan HA, Iqbal MS, Ahmad F, Qaisar R. Probiotics’ supplementation alleviates disease severity and improves postural balance by repairing intestinal leak in patients suffering from osteoarthritis: a double-blinded clinical trial. Br J Nutr. 2024 Dec 28;132(12):1602-1610.
Chen K, Sun Y, Cui L, Zhu Y, Zhang B, Wu L. Effectiveness and safety of probiotics in treating knee osteoarthritis: an updated systematic review and meta-analysis of randomized controlled trials. Front Med (Lausanne). 2026 Jun 16;13:1799943.
Law L, Heerey JJ, Devlin BL, Brukner P, De Livera AM, Hebert JR, Price S, White NP and Culvenor AG (2025) The inflammatory potential of diet in adults with knee osteoarthritis: sex-specific associations with quality of life, sleep, fatigue and mental health. Front. Nutr. 12:1624852.
Huang K and Cai H (2026) Mechanisms of pain occurrence in osteoarthritis: peripheral triggers, sensitization, and the path to persistence. Front. Immunol. 17:1820875.
Neogi T, Felson DT, Sarno R, Booth SL. Vitamin K in hand osteoarthritis: results from a randomised clinical trial. Ann Rheum Dis. 2008 Nov;67(11):1570-3.
Fladerer-Grollitsch JP, Klein T, Kompek A, Steiner N, Menzel D, Schön C. Effects of cartilage-supporting nutritional supplementation on knee osteoarthritis symptoms and quality of life in a 12-week randomized double-blind placebo-controlled pilot study. Sci Rep. 2025 Jul 15;15(1):25625.
谷禾健康
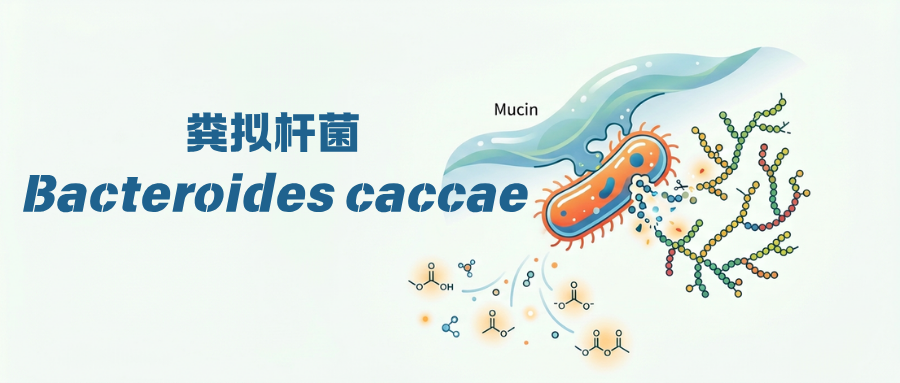
粪拟杆菌(Bacteroides caccae)是一种革兰氏阴性、厌氧细菌,是人类肠道微生物群中不可或缺的成员,在多糖和寡糖代谢方面发挥着重要作用。
需要注意的是,粪拟杆菌有时会与粪便拟杆菌(Bacteroides stercoris)混淆。根据谷禾数据库的人群检出率数据,Bacteroides stercoris 的检出率通常较高,可达 97.12%;相比之下,Bacteroides caccae 的检出率相对较低些,为 85.58%。
Bacteroides caccae还是最早定植在婴儿肠道中的微生物之一,这一点尤为重要,尤其是在婴儿时期。这一时期会影响到结肠的环境,并可能对日后健康与发育产生影响。
B. caccae能够利用多种碳源,包括黏蛋白和复杂糖类,这为它自身以及其他有益的肠道细菌创造了生存空间。它还能产生抗炎分子,有助于减轻炎症、促进黏膜免疫系统的正常运作,并维护肠道健康。
然而,B. caccae在身体虚弱或免疫力下降的情况下也可能成为机会性病原体,能够侵入血液系统并引发严重的感染。
形态学特征
•革兰氏阴性
•专性厌氧
•无芽孢
•形态:典型为小杆菌/短杆菌,不具运动性
•类型菌株:ATCC 43185
血液中的Bacteroides caccae
编辑
doi: 10.1177/03000605211047277.
生长环境与生态位
↘ 生长条件
•温度:适宜于37°C
•氧条件:需要厌氧环境
•营养类型:对肠道里可利用的多糖(如阿拉伯糖半乳聚糖 AG、阿拉伯半乳聚糖相关底物)、宿主糖胺聚糖(GAG,如软骨素硫酸盐)、黏蛋白相关糖蛋白/糖肽以及蛋白质(如乳清蛋白)都有代谢能力。
↘ 生态位与“营养稀缺策略”
拟杆菌属的重要生物学逻辑是:当单糖/寡糖等可利用底物不足时,会通过大规模酶体系(外膜摄取受体、胞外/周质水解、胞内转运与代谢)将复杂底物拆解后再进行利用。
蛋白水解的代谢研究表明,补充乳清蛋白后,B.caccae的生长速率、最终生物量和 SCFAs(短链脂肪酸)生成显著提高。
GAG(软骨素)降解相关基因机制研究证明其具备对糖胺聚糖结构进行分段降解的酶协同能力。
黏蛋白降解的 O-糖肽酶机制研究指出:B. caccae 通过多样化的 M60 家族 O-糖肽酶识别并切割黏蛋白中的 O-糖链,从而打开宿主黏液的营养来源。
人群中的分布
↘ 健康人群中较常见
B. caccae在健康成人肠道菌群中并非罕见成员,且丰度会受到出生方式、喂养方式、饮食结构等影响。
↘ 可以由母亲传给婴儿
编辑
影响因子:4.016
一项大型斯堪的纳维亚队列研究表明:拟杆菌属菌株在阴道分娩婴儿中更常检出,其中B. caccae与 Phocaeicola vulgatus的检出率更高;同时,B.caccae被界定为首次明确证实的母婴共享拟杆菌菌株之一。
这提示:分娩方式会影响婴儿早期的定植生态,而拟杆菌属(包括 B. caccae)具备母体传播并在婴儿早期肠道建立的潜力。
代谢能力
B. caccae的代谢能力可概括为三条主线:
(A)复杂膳食多糖/寡糖
(B)宿主黏液/糖胺聚糖
(C)蛋白 → 发酵终产物(含 SCFAs)
↘ 黏蛋白降解:O-糖肽酶的底物识别与切割
编辑
影响因子:4.238
“黏蛋白降解 O-糖肽酶”研究指出:
该菌有16个peptidase_M60 家族 O-糖肽酶基因;
至少13个能产生活性黏蛋白降解酶;
通过高通量 FRET 筛选 + 动力学分析,鉴定到5种关键的 O-糖肽酶;
虽然这些酶亲缘关系接近,但表现出显著不同的底物选择性。
这解释了为什么 B. caccae 能高效“拆解多样化黏蛋白糖肽底物”:它不是单一酶负责全部,而是同家族多酶并行,通过底物谱差异提高覆盖面。
↘ 糖胺聚糖/软骨素硫酸盐降解
编辑
影响因子:4.238
对软骨素(chondroitin)/糖胺聚糖降解的研究展示了典型 Bacteroides 风格的“基因座模块化”:
多糖利用位点(PUL)的一部分成分可触发对软骨素硫酸盐的降解,过程涉及去磺化,可把含硫的结构转化为无磺化软骨素。
文献还给出了关键酶的协同关系,例如:
•BcPL35(多糖裂解酶)作为启动/关键切割环节;
•BcGH88(外切β-尿核苷水解酶)与其协同;
•BcGH109(α/β-N-乙酰半乳糖基苷酶)参与特定糖基片段的处理;
•BcGDH(作为新的糖脱水酶)在代谢结构分解理解中很重要。
这个证据支持:B. caccae能把宿主/来源于组织或动物制品的糖胺聚糖作为“可优先营养”。
↘ 膳食多糖利用:发酵与拟杆菌互作
AG(阿拉伯糖半乳聚糖)发酵中拟杆菌种类之间相互作用”的研究显示:
编辑
影响因子:6.306
在对来自枸杞的 LBP-3(AG相关底物)进行发酵时,P. vulgatus 与 B. caccae对底物的偏好不同:
P. vulgatus更偏好阿拉伯糖(Ara)富集链段;
B. caccae更偏好半乳糖(Gal)富集链段。
两者在发酵过程中释放的寡糖种类数不同(例如 P.vulgatus鉴定出更多种寡糖片段),体现“功能互补”,这些发酵上清/产物还能促进其他 Bacteroidetes的生长,尤其促进P. distasonis、B. uniformis等(交叉喂养的生态证据)。
此外,单培养中,B. longum和B. caccae对 AG 的降解都不算高(48h分别约25%与39%)。
但共培养后发生生态位重排:B. longum的生长增强、AG降解可提高到约48%。同时观察到pH下降,并对B. caccae的生长/代谢产生抑制,提示可能存在“代谢互作 + 环境约束(酸化)”的双重作用。
↘ 蛋白利用:乳清蛋白补充增强生长与SCFAs
编辑
影响因子:6.633
为B. caccae 设计蛋白水解模块的代谢建模”提供了更偏代谢工程/系统生物学的证据:
补充乳清蛋白后,B. caccae生长速率、最终生物量、SCFAs产生显著增加;
基因组分析识别出大量候选蛋白酶及氨基酸转运相关系统
这支持了:B. caccae 不只是多糖/黏液使用者,也能在高蛋白饮食或蛋白可用性升高情境中发挥显著代谢贡献。
与人体及其他菌群的互作
① 互作1:交叉喂养
AG(阿拉伯糖半乳聚糖)发酵时,不同拟杆菌对链段偏好不同 → 释放不同寡糖谱;这些寡糖/上清可以促进其他拟杆菌门甚至副拟杆菌属的生长。
这是一种“生态网络层面的互补利用”。
② 互作2:环境约束(酸化/代谢产物)
B. longum 与B. caccae共培养研究显示:
双歧杆菌可能通过发酵产物导致pH下降,从而对 B. caccae 生长/代谢形成抑制。
这说明互作不是“总是协同”,而是会受到代谢产物和局部生态位条件共同调制。
③ 互作3:与免疫相关外膜蛋白
用与炎症性肠病(IBD)相关的 pANCA 单克隆抗体从 B. caccae 鉴定到一个约 100 kDa 的 TonB 连接型外膜蛋白,命名为 OmpW。OmpW 仅在B.caccae 中存在(至少在他们检测的范围内是拟杆菌特异)。
序列/结构域分析表明其为 TonB 连接受体家族成员
部分克罗恩病(CD)患者体内针对 OmpW 的IgA升高,提示其可能成为 CD 相关免疫应答靶标。
但研究人员也强调:抗 OmpW IgA 与 pANCA 活性并非完全一致(提示免疫谱复杂,不同患者/不同抗原的主导性不同)。
Bacteroides caccae 的健康益处
B. caccae在人体健康状态下可能具有以下作用:
1. 影响婴幼儿早期肠道微生态
Bacteroides caccae在婴儿肠道的早期定植过程中起着重要作用。这种细菌是首先定植在婴儿肠道中的微生物之一,尤其是在通过阴道分娩的婴儿身上。
B. caccae的早期定植可能会改变肠道微环境,进而可能影响幼儿的身体健康和后期发育。
2. 影响婴儿的免疫分化、避免过敏
B. caccae,能够降解多种糖苷物质。通过分泌脂多糖(LPS),并刺激T细胞的产生和分化,有助于帮助婴儿避免患上过敏性疾病。
B. caccae相对丰度较低与婴儿食物过敏及特应性皮炎发生相关,提示早期细菌定植具有重要意义。
3. 把黏蛋白作为可利用的营养
B. caccae能够利用多种碳源,包括黏蛋白以及简单和复杂的糖类。B. caccae是黏蛋白降解能力很强的拟杆菌,其基因组中含有16个 peptidase_M60 家族的 O-糖肽酶(O-glycopeptidases)候选基因,并且对底物识别/切割具有多样的底物选择性。
在正常菌群结构下,这类酶系统可能帮助细菌更有效地利用黏液表层的糖蛋白片段;
在与其他菌的交叉喂养网络耦合时,可能促进群落代谢稳定(例如把大分子糖蛋白逐级降解为更小的寡糖/氨基酸或发酵底物)。
•关键点:这类“黏蛋白降解”在健康里不必然是坏事——它取决于菌群平衡、黏膜屏障状态与底物供给是否匹配。
•与AKK菌是否相似?
从代谢角度看,B.caccae与Akkermansia muciniphila的相似性在于二者均能利用黏液相关糖结构作为营养来源。
但“黏液利用”在健康中的意义并非由降解能力单独决定,而更可能取决于:黏膜屏障的稳态水平、菌群间交叉喂养网络能否将降解产物进一步转化为有利代谢物,以及底物供给与降解位点是否匹配。因此,黏液相关降解在正常生态中可能通过逐级分解与底物再分配促进代谢稳态;而在屏障受损或底物结构失衡时,降解过程可能改变黏膜微环境并影响炎症走向。
4. 拓展营养底物谱,参与群落“功能分工”
•降解代谢糖胺聚糖(GAG,如软骨素硫酸盐)
B. caccae的多糖利用位点(PUL)相关元件参与软骨素/糖胺聚糖结构的降解,并且过程涉及脱磺化把含硫结构转成无磺化软骨素等形式。
PUL中关键酶存在协同关系(例如由多糖裂解酶 BcPL35 启动,并与其他外切/特定糖苷酶共同作用)。
注:某种新的糖脱水酶(BcGDH)对结构分解很关键。
健康意义:在饮食结构多变(纤维、动物源成分差异)或宿主组织糖胺聚糖可用性变化时,B. caccae 可能帮助肠道保持对复杂糖底物的处理能力,从而维持代谢输出的“可持续性”。
•对复杂多糖/寡糖的利用与互作
在单培养中,B. caccae对 AG 的利用效率有限,且与部分共培养伙伴(如双歧杆菌)之间未表现出强协同;但在共培养后,生态互作效应明显出现:例如可通过改变 pH 与发酵产物谱,进而重塑底物降解程度。pH 下降并抑制某一菌生长,正是典型的“代谢互作”表现。
健康意义:
B. caccae很可能是拟杆菌网络中能在特定底物类型下承担“分解/发酵”环节的一员;
其代谢产物、酸化效应、对寡糖谱的贡献,会影响群落成员的生长与竞争/互利平衡。
此外,B. caccae 还能产生抗炎分子,有助于减轻炎症,从而在构建黏膜免疫系统和维持肠道健康方面发挥重要作用。
总结来说,Bacteroides caccae是一种在人体肠道中至关重要的细菌,它对肠道早期定植和免疫系统的发育起着重要作用。此外,这种细菌还具备多种健康益处,例如抗炎作用以及能够利用多种碳源的能力。
Bacteroides caccae 的致病性影响
虽然B. caccae 在肠道中具有一定的益处,但在健康状况不佳的人群中,它可能会成为一种机会性病原体。
1. B. caccae 可能导致感染
编辑
虽然较为罕见,但这种情况仍有可能发生。在一项报道中,有一名 42 岁的男性患者,患有肾性高血压和胃肠道出血,他出现了由 B. caccae 引起的菌血症现象。
• B. caccae 过多时分解黏蛋白的能力会破坏肠道屏障
B. caccae与 Bacteroides thetaiotaomicron 可共同降解覆盖在上皮细胞上的保护性黏液层中的糖胺物质。由于它们将这些多糖作为能量来源,因而被称为“多糖通用者”,能灵活利用多种多糖,包括膳食纤维以及宿主黏液糖蛋白中的糖链。
因此,B. caccae 可通过自身对黏液糖蛋白的代谢潜力来影响黏液屏障:黏液层究竟更可能被维持还是被破坏,很大程度取决于结肠内是否存在膳食纤维。膳食纤维还能为细菌提供替代能量来源;当其不足时,黏液层可能变稀,从而增加肠道感染与炎症风险。
2. 炎症性肠病:从免疫靶点到黏膜界面
研究者用与 IBD 相关的抗体(pANCA 单抗)从 B.caccae 鉴定出一个约 100 kDa 的TonB-连接型外膜蛋白;在部分 IBD(尤其与 CD 相关)的免疫谱中,该蛋白伴随 IgA 反应增强现象。
• B.caccae 的特定分子可能更易被免疫系统识别
这类结果通常提示:B. caccae 的特定分子产物在疾病状态下更容易被免疫系统“看到”(暴露增加/屏障改变/菌体增多或活化等),因此可作为候选免疫标志物或机制靶点。
3. 其他炎症/代谢相关疾病
对于非 IBD 疾病(如代谢性疾病、肥胖/胰岛素抵抗等),B. caccae更像是“可连到特定代谢通路的候选菌”,其潜在作用可主要通过其代谢能力解释(多糖/GAG/黏蛋白降解、产酸、SCFA 谱变化及群落互作);但要认定其是否为真正的原因菌,仍需更强的证据支持。
与 B.caccae 相关的潜在治疗方法有哪些?
Bacteroides caccae的治疗通常侧重于恢复和维持健康的肠道微生物群。可能的治疗方法包括:
益生菌和益生元:有助于促进有益细菌的生长。
饮食上的改变:多吃富含纤维的食物,以帮助维持平衡的微生物群。
抗生素:在怀疑存在菌群过度生长或感染的情况下可以使用抗生素。不过,如果使用过量,抗生素也会破坏微生物群的正常平衡。
粪便微生物群移植术:在肠道菌群失调的严重情况下,可以考虑采用这种疗法来恢复肠道细菌的平衡状态。
如何支持有益细菌的生长呢?
促进如 Bacteroides caccae 这类有益细菌的生长需要:
保持均衡的饮食,摄入富含膳食纤维的食物,尤其是来自水果、蔬菜和全谷物的食物。
食用发酵食品,如酸奶、酸乳酪和泡菜
应避免过度使用抗生素,因为抗生素会破坏肠道微生物群落的平衡。
保持健康的生活方式,通过定期锻炼和管理压力来保持健康。
粪拟杆菌(Bacteroides caccae)作为拟杆菌属重要的物种,也是人类肠道常见的共生菌。喜欢在没有氧气的环境中生长,能够分解吃进去的复杂膳食纤维,也能利用肠道黏液中的一些糖类物质作为营养。它值得一提的特殊之处是拥有一套比较完整的“分解工具”,可以识别并拆解黏液中的特殊糖链。
从基因和功能来看,粪拟杆菌像是把不同的“分解模块”组合在一起,因此能够适应肠道里多种不同的营养来源。在母亲和婴儿之间也可能共享这种细菌。这些特点说明,它通常是肠道微生物群中比较稳定、具有一定功能的成员。
在肠道健康、菌群平衡时,Bacteroides caccae可以帮助回收和利用食物残渣及肠道黏液中的物质,参与维持肠道的营养和代谢平衡。
在菌群失衡、肠道屏障受损或发生炎症时,Bacteroides caccae的一些细胞表面成分可能刺激免疫系统;同时,它对肠道黏液的分解活动也可能影响黏膜屏障,从而与某些疾病的发生或加重有关。
主要参考文献
Nilsen M, Rehbinder EM, Lødrup Carlsen KC, Haugen G, Hedlin G, Jonassen CM, Killingstad ME, Nordlund B, Ormaasen I, Skjerven HO, Snipen L, Staff AC, Söderhäll C, Sørensen R, Vettukattil R, Wilborn LM, Rudi K. A Globally Distributed Bacteroides caccae Strain Is the Most Prevalent Mother-Child Shared Bacteroidaceae Strain in a Large Scandinavian Cohort. Appl Environ Microbiol. 2023 Jul 26;89(7):e0078923.
Pluvinage B, Bourdon K, Canil O, Deventer A, Alvarez B, Mihalynuk L, Thompson N, Wakarchuk W, Boraston AB. Substrate recognition and cleavage by mucin degrading O-glycopeptidases from the gut microbe Bacteroides caccae. J Biol Chem. 2026 Aug;302(8):113222.
Alvarez B, Canil OF, Low KE, Hettle AG, Abbott DW, Boraston AB. Analysis of chondroitin degradation by components of a Bacteroides caccae polysaccharide utilization locus. J Biol Chem. 2025 Jul;301(7):110354.
Paulay A, Grimaud GM, Caballero R, Laroche B, Leclerc M, Labarthe S, Maguin E. Design of a proteolytic module for improved metabolic modeling of Bacteroides caccae. mSystems. 2024 Apr 16;9(4):e0015324.
Yang Y, Zhang Q, Hu H, Zhang W, Lu T. Bloodstream infection caused by Bacteroides caccae in a patient with renal hypertension: a case report. J Int Med Res. 2021 Oct;49(10):3000605211047277.
Wang Y, LaPointe G. Arabinogalactan Utilization by Bifidobacterium longum subsp. longum NCC 2705 and Bacteroides caccae ATCC 43185 in Monoculture and Coculture. Microorganisms. 2020 Oct 31;8(11):1703.
Wei B, Dalwadi H, Gordon LK, Landers C, Bruckner D, Targan SR, Braun J. Molecular cloning of a Bacteroides caccae TonB-linked outer membrane protein identified by an inflammatory bowel disease marker antibody. Infect Immun. 2001 Oct;69(10):6044-54.
Cao C, Wang L, Zhang X, Ai C, Wang Z, Huang L, Song S, Zhu B. Interaction between Bacteroidetes species in the fermentation of Lycium barbarum arabinogalactan. Food Chem. 2023 May 30;409:135288.
谷禾健康
蚊子可能不只是在“闻”你的汗。
它甚至可能在“闻”你的营养状态。
为什么有些人走到哪里都被蚊子追着咬,有些人却像隐身一样?一到夏天,“为什么蚊子偏偏咬我”就成了经久不衰的话题。
编辑
我们平时说招蚊子,很容易想到血型、体温、出汗,或者笼统地归结为玄乎的“体质”。但从蚊子的角度看,它其实是利用二氧化碳、热量和人体气味来精准锁定宿主的。而“人体气味”绝不是一个简单的变量——它是宿主自身代谢、皮脂、汗液以及皮肤微生物共同发酵出的一套复杂的“生化信号”。
一个有趣的猜想是,我们身体营养状态的变化,会不会通过皮肤菌群和挥发性代谢物,进一步影响蚊子的选择?
近日,来自清华大学、复旦大学等机构的研究团队在《Cell Research》(IF=31.1)发表研究发现,营养不足会让你对蚊子产生致命的吸引力。
研究表明,营养不良会导致宿主的皮脂腺功能减退,使皮肤表面的“天然抗菌防线”(游离脂肪酸)大幅减少。失去压制后,特定皮肤共生菌野蛮生长,挥发出大量的庚醛、辛醛和壬醛。正是这些散发着特殊气味的挥发物,精准锁定了蚊子的嗅觉雷达。
编辑
本文我们来深入了解这项研究,它不仅破解了“招蚊体质”,更为我们理解虫媒传染病提供新的视角——疾病传播不只取决于病原体和媒介,宿主自身的生理状态及其塑造的微生态,也可能成为影响传播效率的重要变量。
四种疾病媒介蚊虫,都表现出了相似偏好
研究者首先构建了营养不足小鼠模型,并使用三笼式嗅觉仪和双通道嗅觉仪,让蚊虫在营养正常和营养不足的小鼠之间进行选择。
实验测试了四种常见疾病媒介蚊虫:
埃及伊蚊(Aedes aegypti)
白纹伊蚊(Aedes albopictus)
致倦库蚊(Culex quinquefasciatus)
斯氏按蚊(Anopheles stephensi)
编辑
结果非常一致:四种蚊子都更倾向于营养不足的小鼠。
这意味着,这种现象可能并不局限于某一种蚊虫。
关键在气味
蚊子寻找宿主时,会综合使用体温、二氧化碳和挥发性气味等线索。
研究者因此继续比较两组小鼠。结果发现,营养不足小鼠与正常小鼠之间,体温和二氧化碳排放没有明显差异。
但当研究人员在嗅觉实验装置中加入除味装置,将宿主释放的挥发性物质从气流中去除之后,蚊子对营养不足小鼠的偏好消失了。
这说明,导致蚊子“区别对待”的核心因素,很可能是宿主气味发生了变化。
于是,问题进一步变成:营养不足的小鼠,到底多了什么气味?
从93种挥发性化合物中,锁定三种醛
研究者利用综合二维气相色谱—飞行时间质谱(GC×GC-TOFMS),分析营养正常和营养不足小鼠释放的挥发性有机物(volatile organic compounds,VOCs)。
一共检测到 93 种化合物。
进一步筛选后,研究人员利用触角电位技术(electroantennography,EAG),直接检测蚊虫触角对这些化合物的反应。最终,有三种挥发性醛类脱颖而出:
庚醛(heptanal)
辛醛(octanal)
壬醛(nonanal)
这三种物质均能在埃及伊蚊、白纹伊蚊、致倦库蚊和斯氏按蚊中引起明显的触角电生理反应,而且呈现一定的剂量依赖关系。
营养不足小鼠释放的三种醛明显增多
接下来,研究者使用固相微萃取—气相色谱质谱(SPME-GC/MS)对三种醛进行绝对定量。结果显示,营养不足小鼠释放的庚醛、辛醛和壬醛,约为正常小鼠的2-4倍。
编辑
当研究人员按照营养不足小鼠的浓度比例,人工配置这三种醛,再涂到已经去除皮肤菌群的小鼠身上时,蚊子同样表现出了更明显的趋向。
也就是说,这三种挥发性物质并不只是“伴随变化”,它们本身就能够驱动蚊虫行为。
动物实验之后,研究团队进一步招募了营养不足者和健康对照。
营养不足者的皮肤气味更吸引蚊子
研究中的营养不足者具有长期营养不足史,成年人BMI低于18 kg/m²,同时蛋白质摄入水平较低。最终有 24 名营养不足者和24 名健康对照参与蚊虫趋向实验,并按照性别、年龄和地区进行匹配。
为了判断蚊子究竟是不是被“气味本身”吸引,研究人员先让参与者在前臂佩戴尼龙套24小时,收集皮肤释放的挥发性物质。随后,将这些带有不同人体气味的尼龙套置于37 ℃加热装置上,让气味重新释放,再送入嗅觉仪供蚊子选择。
结果显示:即使没有真人参与,来自营养不足者的气味样本,对蚊子的吸引力明显高于健康人群。
为进一步验证,研究人员又将营养不足者和健康对照的气味样本分别置于同一名健康志愿者的两侧前臂,使两边的人体背景尽量一致,再利用双通道嗅觉仪让蚊子进行选择。结果依然相同:携带营养不足者气味的一侧更受蚊子偏爱。
人体中,同样是庚醛、辛醛和壬醛升高
研究者随后从24对受试者中随机选择12对进行挥发性代谢物分析。结果显示,营养不足者释放的庚醛、辛醛和壬醛均明显增多,其释放量大约达到健康人群的3-5倍。
注:有意思的是,庚醛、辛醛和壬醛并不是营养不足者特有的异常代谢物,它们本来就是人体皮肤挥发组的一部分。真正发生变化的,更可能是释放量和不同VOCs之间的比例。这也意味着,蚊子识别的可能是一套具有特定浓度和比例的气味组合。
研究者按照健康组和营养不足组实际检测到的比例分别配置三种醛,并涂在同一个人的两侧前臂上进行比较。结果再次显示,模拟“营养不足气味”的一侧吸引了更多蚊子。
至此,小鼠和人体实验得到了一致结果:
营养不足会改变皮肤挥发性气味谱,其中庚醛、辛醛和壬醛是重要的蚊虫吸引信号。
编辑
但这里还有一个更关键的问题。这些挥发性醛,到底是谁产生的?
而当研究人员去除皮肤菌群之后,发现营养不足小鼠和正常小鼠之间原本明显的蚊虫吸引差异消失了;与此同时,庚醛、辛醛和壬醛的释放也几乎被消除。
这说明,皮肤微生物是这些蚊虫吸引性醛类的重要来源。
葡萄球菌和链球菌增加
进一步检测皮肤微生物后,研究者发现,营养不足小鼠皮肤上可培养细菌数量超过正常组的10倍。
16S rDNA测序则发现,其中葡萄球菌属(Staphylococcus)和链球菌属(Streptococcus)明显增加。
研究人员从小鼠皮肤中分离出多种葡萄球菌,包括:
Staphylococcus sciuri
Staphylococcus xylosus
Staphylococcus pseudoxylosus
体外培养发现,这些细菌都能够产生庚醛、辛醛和壬醛。
注:从化学结构上看,这三种物质都属于直链脂肪醛,与皮肤表面的脂质代谢关系密切。皮脂中含有大量甘油三酯、脂肪酸和蜡酯,而葡萄球菌等皮肤微生物本身具有脂酶等脂质代谢能力,可以水解、利用和改造宿主提供的脂质底物。近年来的研究也越来越倾向于把皮肤看成一个“脂质驱动的微生态系统”:宿主提供脂质,微生物再对这些脂质进行二次加工,从而产生新的代谢产物。
营养不足后,到底是“产醛菌”变多了,还是同样的细菌在不同皮脂底物环境下改变了代谢通量,抑或两者同时发生?本研究已经证明相关菌株能够产醛,但具体是哪类脂质底物、哪些微生物酶以及哪条代谢路径贡献最大,还有待进一步解析。
当研究者再把这些细菌涂到小鼠皮肤上时,小鼠对多种蚊子的吸引力随之增强。
人体结果也非常相似
营养不足者皮肤上的可培养细菌同样显著增加,葡萄球菌属和链球菌属丰度升高。
研究者分离出的Staphylococcus epidermidis、Staphylococcus hominis、Staphylococcus warneri、Staphylococcus capitis、Streptococcus salivarius等,在模拟人体汗液和皮脂环境中,也都能够产生上述挥发性醛类。
编辑
那么问题来了,为什么营养不足会让皮肤菌群大量增长?
营养不足损伤了皮脂腺功能
研究者对小鼠皮肤进行了转录组、组织学和脂质分析。
结果发现,营养不足小鼠的皮肤层明显变薄,皮脂腺形态和发育出现异常,皮脂腺面积减小,皮脂含量也显著下降。
这一步很重要。因为皮脂并不只是我们日常理解中的“油”。皮脂中包含多种具有抗菌活性的游离脂肪酸,是维持皮肤微生态稳态的重要组成部分。
多种具有抗菌作用的游离脂肪酸减少
研究人员进一步进行LC-MS/MS检测发现,营养不足小鼠皮肤表面的多种游离脂肪酸下降,包括肉豆蔻油酸(myristoleic acid)、顺式-10-十五碳烯酸(cis-10-pentadecenoic acid)、丁酸、丙酸等。
体外抑菌实验显示,其中部分脂肪酸能够明显抑制此前筛出的葡萄球菌。
在人群样本中也观察到类似现象:营养不足者皮肤表面多种游离脂肪酸含量降低。
正常情况下,皮脂腺分泌的脂质和游离脂肪酸,会对皮肤微生物形成持续的选择压力。
当营养不足导致皮脂腺功能下降、抗菌脂肪酸减少后,这层“生态约束”被削弱,一部分细菌便获得了更多增殖空间。
于是:
皮脂腺功能下降 → 抗菌脂肪酸减少 → 葡萄球菌等扩增 → 挥发性醛增加。
研究者还进一步通过干预验证了这条链路:给营养不足小鼠补充相应脂肪酸后,皮肤细菌数量和三种挥发性醛均下降,对蚊虫的吸引力也随之降低。
营养不足还会提高登革病毒感染和传播效率
如果营养不足只是让人更“招蚊子”,这件事本身就已经够烦了。被叮之后的红肿、瘙痒,常常让人忍不住反复抓挠;尤其到了蚊虫活跃的季节,几只蚊子就足以让人坐立不安,甚至影响休息。
但研究者进一步发现,它还可能同时影响病毒传播的另一端。
在登革病毒2型(DENV2)感染实验中,营养不足小鼠感染后体内病毒载量更高。
与此同时,蚊子在营养不足小鼠身上的吸血率更高;这些蚊子吸血以后,体内DENV2的病毒载量和感染率也更高。
“蚊子-宿主-蚊子”传播循环被进一步放大
研究人员随后设计了一个更接近群体传播的实验。
编辑
他们分别建立营养不足小鼠占比为0%、10%和60%的三个群体,再让携带DENV2的埃及伊蚊进入其中。
结果显示,在营养不足个体占比达到60%的群体中,小鼠病毒载量更高;随后前来吸血的未感染蚊虫,其吸血率和DENV2感染率也更高。
编辑
蚊子挑人,挑的不只是“体味”,还有营养状态在皮肤菌群上留下的痕迹。这项研究揭示了,营养不足削弱皮肤的脂质防线,改变皮肤微生态,进而改变气味,让宿主更容易成为蚊子的目标。
看似是蚊子的偏爱,背后却是营养、皮肤屏障与微生物共同作用的结果。 营养不良带来的风险,可能不只在于削弱身体抵御感染的能力,也包括更容易成为蚊虫叮咬的目标。
小编点评
我们常说“弱肉强食”,而在微观层面,大自然的设计更为冷酷,疾病往往会寻找最脆弱的缺口进行精准打击。
这不仅是一项关于蚊子口味的趣味发现,更是对现代公共卫生防御体系的启示。未来值得期待的是防控思路的拓展:除了阻断蚊虫叮咬,能否通过改善营养、维护皮肤微生态,减少宿主易受叮咬的条件?
过去,医学与公共卫生多将视角局限于宿主免疫与病原体本身;而未来,精准的菌群检测与微生态代谢物图谱,将成为撬动疾病预防与健康评估的底层杠杆。
当我们能通过便携、高精度的微生态检测,在分子与菌群丰度层面提前捕捉微生态失调与代谢异常的微弱信号,传统的“被动驱蚊、发病后治疗”模式将重构。
菌群检测也不局限于肠道,皮肤、呼吸道等更细分的微生态测序与代谢物分析,将为精准评估个体的营养储备、免疫机能乃至环境适应力,提供数据支撑。
不仅是公共卫生,这套认知同样能切实赋能大众的个护与美业。当我们量化皮肤表面的微生态与代谢状态时,针对性的微生态护肤、精准营养干预将变得有据可依。
主要参考文献
Wang M, Song X, Zhu Y, Niu J, Wang G, Wang Y, Xiao H, Lei D, Wu T, Liu L, Wang P, Wang J, Cheng G. Undernutrition enhances host attractiveness to mosquitoes and transmission of mosquito-borne diseases. Cell Res. 2026 Sep 16.
谷禾健康
结直肠癌(CRC)与肠道菌群之间的关系已有较充分的研究证据,但不同地区、不同人群以及不同研究设计所获得的具体菌群特征往往存在差异。相同细菌在不同队列中,也可能呈现出不同程度的疾病相关性。因此,单纯依赖某一个菌种的出现或丰度变化,往往难以形成稳定、可重复、具有广泛适用性的疾病标志物。
这也意味着,菌群检测真正需要解决的,并不是简单判断“某一种菌增加了还是减少了”,而是要从高度个体化、易受地域、饮食、生活方式及短期生理状态影响的菌群数据中,识别出跨人群、可重复、具有生物学解释力的稳定信号。换言之,疾病相关菌群更可能表现为一种由多个菌种、功能基因、代谢通路及菌群互作共同构成的整体状态。
近日,一篇发表于《Gut Microbes》的研究提出了另一种解释:结直肠癌相关菌群可能并不是由一组固定的菌群物种定义的,而是由不同细菌共同形成某种趋同的功能状态。也就是说,虽然不同患者体内的具体菌种可能并不完全相同,但它们可能通过不同的菌种组合,共同实现相似的营养获取、环境适应、微生物竞争以及与宿主相互作用的功能。
这一发现与谷禾健康构建菌群检测分析模型的基础逻辑高度契合。谷禾并不将检测结果简单建立在单一菌种或单一丰度指标之上,而是依托海量肠道菌群数据,重建和训练菌群基础大模型,在菌种组成的基础上进一步识别菌群功能、代谢通路及其相互作用关系,并通过功能和健康轴提取与疾病状态相关的综合特征。这样,模型关注的就不再是某一个菌种在某一次采样中的短期波动,而是菌群整体是否形成了与特定疾病或健康状态相对应的功能模式。
该研究利用泛基因组和共关联基因簇(CAGs)框架,分析 13 种细菌、3711 个 CAG,并在来自日本、美国和欧洲的三个 CRC 宏基因组队列中评估其关联。结果显示,CRC 与健康相关的菌群特征并不能简单归结为某一类固定物种:谱系内较稳定的“专职型”特征与跨谱系分布的“兼职型”特征可以同时存在,而不同物种之间还出现了功能趋同与组合关联。
编辑
这说明,疾病相关信号可能同时存在于多个层次:既包括菌种和菌株层面的变化,也包括基因簇、功能模块、代谢通路以及不同菌群成员之间的协同或拮抗关系。对于实际检测而言,从单一指标转向多维特征整合,能够减少对某一个菌种、某一个基因或某一次丰度变化的依赖,从而更接近复杂疾病真实的微生态基础。
谷禾健康模型正是基于这一思路,将海量样本中的物种组成、菌群丰度、功能基因、代谢能力、菌群互作及宿主相关健康特征进行系统整合,并通过模型训练识别不同疾病状态下反复出现的功能组合和代谢网络。由于疾病相关的生态改变可能由不同菌种通过趋同功能共同实现,因此,即使个体之间的具体菌群成员存在差异,模型仍有机会通过更高层级的功能信号识别其共同的疾病相关状态。这也是谷禾健康菌群检测模型能够兼顾准确性、稳定性与生物学解释力的重要基础。
物种组成和丰度是理解肠道菌群的重要基础,也是目前微生物组研究中最常用的信息维度之一。但对于结直肠癌(CRC) 这类复杂疾病,仅依赖单一物种的升高或降低,往往还不足以解释菌群与疾病之间复杂的生物学关系。
这篇研究进一步把分析尺度延伸到了泛基因组和功能基因层面。原因在于,同一物种内部不同菌株的基因组成并不完全一致,而系统发育距离较远的细菌,也可能因为趋同进化、基因获得与丢失,甚至水平基因转移,携带相似功能的基因。
对实际菌群检测而言,研究尺度越细并不意味着单一指标就越有解释力。复杂疾病往往涉及多种微生物、功能和生态关系,因此,如何基于足够大的参考数据库,从多个菌群特征中识别稳定的疾病相关模式,可能比单独追求某一个分类层级更重要。
基于泛基因组的CAG特征解析
泛基因组关注的不是某个物种的一株代表菌,而是这个物种所有已知菌株共同拥有的基因集合。研究重点分析了CAGs(共关联基因簇)。CAG由一组共同出现的蛋白编码基因构成,可以理解为比物种更精细的功能单元。
研究覆盖13种细菌,共分析3711个CAG,并利用来自日本、美国和欧洲的三个独立CRC宏基因组队列进行验证,总体包括379名CRC患者和347名健康对照。
从物种泛基因组到CRC相关gene bin的识别
编辑
值得注意的是,三个队列在具体 gene bin 层面的一致性并不高。作者认为,这可能与测序平台、测序深度、来源人群以及生物学异质性等差异有关。因此,这项研究关注的重点并不是某一个具体 gene bin 能否在不同人群中反复出现,而是不同细菌是否会在更高层面的功能上表现出趋同。
这一点对于菌群检测模型具有重要启发。现实检测中,样本采集、测序深度、个体饮食、药物使用及肠道短期状态,都可能导致部分菌种或基因簇的检测结果发生变化。如果模型过度依赖某一个具体菌种、某一个基因簇或某一个丰度阈值,就可能在不同时间、不同人群或不同检测条件下产生较大偏差。
谷禾健康模型通过海量菌群数据训练,不仅学习单个菌种或基因簇与疾病之间的关系,更重要的是提取多个菌种之间的共同功能、代谢网络和健康状态特征。当某一个菌种在样本中暂时减少,或者某一个功能由其他菌种补偿时,模型可以通过整体功能网络进行综合判断,而不是简单地将局部丰度变化等同于疾病风险变化。
-专职型(Specialists)
这位类基因主要集中在某一个特定菌株谱系中,谱系保守性较高,说明它们更可能长期伴随这一支菌株稳定存在。
-兼职型 (Side hustlers)
这类基因并不固定存在于某一个谱系,而是分散出现在不同菌株中,表现出较强的基因组可塑性。
为了描述这种差异,作者设计了一个单系性评分(monophyly score)。
评分越高,说明某个基因簇越集中在特定进化谱系中;
评分越低,则说明这个基因簇在系统发育树上的分布越分散。
编辑
注:“专职型”和“兼职型”更像是描述谱系分布的两个端点,而不是把所有基因硬性分成两个互斥类别。
普拉梭菌是整篇文章里很有代表性的一个例子。
普拉梭菌(Faecalibacterium prausnitzii)通常被认为是健康相关菌,同时也是重要的产丁酸菌。但这篇研究发现,普拉梭菌内部同时存在健康相关和CRC相关的基因簇。
两者的谱系分布不同。
健康相关CAG具有更高的monophyly score,更符合稳定存在于特定谱系中的专职型特征;
CRC相关CAG则表现出更低的单系性,更接近分散在不同菌株中的兼职型。
这说明,同一种细菌内部可以同时存在不同的功能模块。
编辑
注:这个结果并不意味着CRC相关基因普遍都是“兼职型”。在所有物种中,只有F. prausnitzii表现出明确差异,其他物种在多重校正后并没有出现同样的趋势。CRC相关和健康相关的基因特征中,都可能同时存在两种模式。不同的是这两类特征在不同菌种中的组合和比例。
当作者把不同细菌中的结直肠癌相关CAG一起分析时,出现了一个重要现象:功能趋同(functional convergence)。
虽然这些基因簇来自不同细菌、不同谱系,但其中反复出现了一些相似功能,尤其包括:
T4SS,IV型分泌系统
T4SS涉及细菌间或细菌与宿主之间的物质传递,也与移动遗传元件有关;
TonB依赖性受体
TonB相关系统参与铁等营养物质摄取;
RagB/SusD家族营养摄取蛋白
RagB/SusD则与复杂营养底物的利用有关。
编辑
这些功能并不相同,但有一个共同点:都与细菌在复杂肠道环境中的生存和竞争能力有关。
作者进一步发现,共有14类蛋白家族反复出现在至少5个不同gene bins和多个细菌物种中。
编辑
这提示,CRC相关肠道环境可能并不是选择某一种固定细菌,而是在选择某些适合这一生态位的功能能力。
这正是谷禾健康模型从菌种层面进一步提取功能和代谢网络的理论基础。模型通过海量菌群数据识别不同物种之间重复出现的功能信号,并将这些功能信号与疾病表型、代谢状态及健康轴进行关联。相比依赖单一菌种丰度的检测方式,功能层面的特征通常具有更强的跨个体解释能力,也更不容易受到某个菌种短期波动的影响。
因此,即使个体A和个体B的菌群组成并不完全相同,只要其菌群在营养摄取、铁竞争、代谢转化、宿主互作等方面呈现出相似的功能网络,谷禾健康模型就有可能识别出两者所处的相近疾病相关状态。这种“不同菌种、相似功能、共同预测”的逻辑,有助于提升模型在不同人群中的泛化能力。
Fusobacterium animalis的多重进化策略
Fusobacterium animalis很好地体现了这种复杂性。
研究发现,它的 CRC 相关 gene bins 横跨高、低不同的单系性评分;其中多个基因簇携带 T4SS 相关功能,但这些功能所在的基因簇具有不同的谱系来源。
编辑
这意味着,即使在同一个物种内,与 CRC 相关的功能也可能同时依赖两种模式:
一部分长期保留在特定谱系中;
另一部分更加灵活,可能经历反复获得或丢失。
CRC 相关生态位对“功能能力”的选择,并不一定要求某一个固定菌株在所有个体中扩张。
如果一种菌群特征未来希望用于检测或长期追踪,一个现实问题是:它在同一个人身上是否足够稳定?作者利用纵向样本进一步评估了 pangenome bin 的时间稳定性。
总体上,同一个体不同时间点之间的 gene bin 丰度相关性高于不同个体之间;对大多数研究物种而言,即便经历肠道清洁这样的急性扰动,bin 层面的结构也没有出现大幅变化。这说明,部分菌株/基因层级信号具有一定的个体内持续性。
但稳定性也并非所有菌都一样。Escherichia coli和Fusobacterium animalis的个体内时间相关性相对较低,提示某些菌的基因组构成可能更容易波动。
“时间稳定”并不等于“已经具备诊断价值”:这些信号能否提高 CRC 识别能力,仍然需要在前瞻性人群中与物种水平模型进行直接比较。
同一个人的菌群会变化,但人与人之间的差异往往更大。因此,一个指标是否“异常”,不仅取决于某一次检测值,还与个人长期基线和参照人群有关。未来如果希望提高菌群信号的解释力,横向的人群参照和纵向的个人变化可能需要同时考虑。
作者进一步做了不同物种 gene bins 之间的两两组合分析,希望寻找“单独看不明显、组合后关联增强或减弱”的候选关系。
研究在Yachida队列中对不同物种的pangenome bins进行了两两组合分析,并在logistic回归模型中加入交互项。仅两两组合就拟合了980,001个模型,随后按照交互项的统计显著性排序,选取前200组进行探索性分析。
一旦从单菌、单基因进入组合分析,可比较的可能性会呈指数式增加。 这项研究仅考察gene bin的两两组合,就产生了接近98万个模型;如果继续加入更多菌种、功能、代谢物以及宿主因素,数据维度还会进一步扩大。因此,高维菌群研究困难的是如何从大量可能的组合中区分稳定信号、偶然共现和统计噪声。
1 协同关联,CRC风险增加
F. animalisbin 66与 Clostridium scindens bin 169
最突出的一组是 Fusobacterium animalis bin 66 与 Clostridium scindens bin 169。
在 Yachida 队列的逻辑回归模型中:
两者同时存在时,模型中的CRC概率约为0.91;而只出现其中一个bin时,CRC概率约为0.45。
注:这里的“0.91”是特定队列、特定统计模型中的条件概率,不能解释为“一个人携带这两个基因簇就有 91% 的患癌风险”。
基于已有生物学知识,作者提出假设:
C. scindens 可能通过改变胆汁酸环境,为携带特定功能基因的F. animalis 提供更加适合的生态位,两者进一步形成协同的CRC相关环境。
注:目前这一点仍然只是统计关联和机制假设。仍需要共培养、动物模型和代谢检测进一步验证。
这里还牵出了一条重要的菌群-胆汁酸-宿主共代谢轴。人体首先在肝脏合成初级胆汁酸,进入肠道后,再由部分肠道细菌进一步转化。C. scindens是一种具有较强胆汁酸7α-脱羟基化能力的细菌,可以将初级胆汁酸转化为包括脱氧胆酸(DCA)在内的次级胆汁酸。DCA与DNA损伤和结肠细胞凋亡抑制有关。
胆汁酸因此并不只是帮助脂肪消化的物质,它同时也是能够影响肠道上皮、代谢和信号通路的活性分子。已有研究还发现,饮食改变胆汁酸输入后,也可能进一步改变肠道微生物对胆汁酸的转化。 因此,这类跨物种组合值得关注的地方,不仅是两种菌同时出现,还有它们是否共同塑造了一个不同的代谢环境。
2 健康相关菌,也可能参与CRC组合
普拉梭菌bin 166 和 F. animalisbin 94
这二者同时存在时,CRC关联明显增强。尤其值得注意的是,普拉梭菌通常被视为健康相关菌,但普拉梭菌 bin 166本身属于低丰度、低单系性评分的“兼职型”基因簇。
这个结果再次说明,用“好菌/坏菌”的物种标签概括一个物种,可能会掩盖菌株和基因层面的差异。
3 协同 / 拮抗型基因组合
例如,Eggerthella bolteaebin 345与 Escherichia colibin 583同时存在时,与较低的CRC概率相关。
协同和拮抗的CRC/健康相关基因组箱
编辑
另一方面,E. colibin 79与Ruminococcus torquesbin 59共同存在时,CRC关联又明显增强。
有意思的是,R. torquesbin 59的单系性评分为1.0,是非常典型的“专职型”;而与它协同的E. coli bin 79则属于另一种谱系分布模式。
这些结果提示,CRC相关菌群更像一个由多个功能模块共同组成的生态网络。
注:该研究目前仍属于探索性工作,提供一种“概念验证”式的方法框架,还不能直接等同于可用于临床诊断的新指标。研究只覆盖 13 种细菌,古菌、真菌和病毒并未纳入;作者强调,未来还需要扩大菌种和人群范围,并结合基因组共线性、质粒分析、机制实验及前瞻性队列进一步验证。
这项研究带来的一个重要变化,是将CRC相关菌群的观察尺度,进一步延伸到同一物种内部携带哪些基因、不同细菌是否共享相似功能,以及这些特征之间如何组合出现。
这项科研工作的价值,或许并不在于立即提供一套可直接用于CRC检测的新指标,而在于提出了一种值得进一步验证的研究思路:面对高度复杂且存在显著个体差异的肠道菌群,与其依赖某一个孤立的菌种或功能指标,不如基于大规模、长期积累的真实世界样本,系统识别跨人群、可重复、具有生物学意义的菌群功能模式。只有在足够丰富、多样且持续扩展的样本基础上,才能进一步验证这些功能信号的稳定性、泛化能力及其在疾病预测中的实际价值。
主要参考文献
Lee J, Minot S, Dey N. Pangenome analysis reveals both niche-specific “specialists” and microbial “side hustlers” in colorectal cancer microbiomes. Gut Microbes. 2026 Dec 31;18(1):2728331.
谷禾健康
人类口腔微生物组是一个微生物密集、化学信号持续变化的生态系统。每天刷牙、漱口,背后都有数以百亿计的微生物在牙面、舌背和牙龈沟“分工协作”。它们争夺营养、彼此发送信号,也共同搭建生物膜。不同微生物之间的竞争与协作共同塑造群落结构,并影响宿主健康。
当长期高糖饮食、清洁不足或反复炎症,改变的不仅是单一细菌的数量,更是整个微生物群落的关系网络:多样性下降,变形链球菌、牙龈卟啉单胞菌等潜在致病菌占据优势,而维持稳态的共生链球菌、Rothia 和 Actinomyces 则受到竞争减少。龋齿、牙周炎和牙龈炎等疾病已影响至少数十亿人,口腔微生物群还可能与心血管疾病和神经退行性疾病相关。
究竟是什么让口腔微生物群落从“相安无事”转向“持续失衡”?答案可能不只藏在单一菌群里,也藏在微生物制造的天然产物中。宏基因组研究显示,口腔微生物携带丰富的生物合成基因簇(BGCs),具有生产多样天然产物的巨大潜力。
这些代谢物正被逐渐视为介导微生物相互作用的关键媒介,许多口腔 BGC 与健康或疾病状态相关。它们能够调节细菌附着、生物膜、竞争、铁获取、氧化应激和宿主免疫。研究已在口腔中发现数千至上万个 BGC,且部分基因簇在健康、龋齿和牙周炎状态之间存在差异。
本文将聚焦结构复杂、合成代价较高的非核糖体肽(NRP)和多聚酮(PK),从 mutanofactin、mutanocyclin、mutanobactin、salivabactin 和 enterobactin 出发,追踪它们如何塑造口腔群落,再转向尚未揭示的 BGC 及其调控机制。我们也将进一步追问:口腔菌群检测能否从“检测到哪些菌”,走向“哪些功能正在表达、哪些化学变化正在发生”?
口腔微生物的基因中存在大量能够生产这些化学物质的“基因生产线”,所以研究这些基因簇,有助于理解口腔疾病是如何发生和持续的,也可能帮助发现新的药物或治疗线索。
口腔微生物群是一个持续通过化学互作进行适应的动态共同体,维系着口腔健康与疾病之间的微妙平衡。龋齿、牙周炎与牙龈炎等口腔疾病在全球极为常见,估计至少影响着数十亿人。
近年来,口腔微生物群组成还与心血管及神经退行性疾病等系统性疾病相关,这进一步突显了理解其生化影响的必要性。
口腔疾病通常与局部菌群失衡相关
口腔疾病通常与局部菌群失衡相关:微生物多样性降低,而变形链球菌(Streptococcus mutans)和牙龈卟啉单胞菌(Porphyromonas gingivalis)等潜在致病类群占优势。
相较之下,健康口腔往往具有更丰富且更稳定的共生链球菌群,以及罗氏菌(Rothia)和放线菌(Actinomyces)等。它们分别定植于牙齿表面、舌背与龈沟等不同生态位,并通过形成结构化生物膜而发挥保护或致病作用。高糖饮食、宿主炎症反应及遗传易感性等因素都可能打破这种平衡。
口腔天然产物是致病的关键因子
尽管已广泛研究疾病过程中菌群组成的变化,但群落如何在生化层面转向致病性优势状态的机制仍未明晰。天然产物或特定代谢物是细菌用来调控生长、行为与群落结构的关键小分子。这些分子可为阐明微生物失衡的化学驱动因素以及疾病进展中的关键环节提供路径。
按生物合成来源,天然产物通常包括:多聚酮(PK)、非核糖体肽(NRP)、核糖体合成并经翻译后修饰的肽(RiPP)、萜类、糖类、生物碱、杂合分子等,另外还有一些由基础代谢“衍生出来”的小分子。
要合成某一类天然产物,细菌通常需要一整套相关基因协同工作:这些基因常常会和调控、运输和自我保护(避免被自己产物伤害)等基因一起聚在染色体上的某个区域,形成生物合成基因簇(BGCs)。
注:之所以能用计算方法去找这些“基因包”,是因为在 BGC 中常能观察到一些典型“合成机器”——例如PKS(多聚酮合成酶)、NRPS(非核糖体肽合成酶)和萜烯合酶等线索;把这些信息和 DNA 序列一起分析,就能预测可能存在的 BGC。
★ 健康、龋齿与牙周炎状态下的BGC差异显著
研究者已经在大量口腔细菌基因组与宏基因组数据中系统挖掘到了 BGC 的化学潜力。比如,对461个口腔细菌基因组进行绘图,发现近 5000 个 BGC,并且健康、龋齿和牙周炎三种状态下的 BGC 存在明显差异。
口腔微生物群中包含着多种多样的细菌基因簇
编辑
doi: 10.1128/mBio.00321-19.
进一步在唾液和牙菌斑宏基因组中,对牙周炎患者与健康对照进行比较,识别出超过10700个 BGC。从健康与龋齿来源的宏基因组中识别约 4500 个 BGC,其中将近一半在健康与龋齿的宏转录组数据中呈现显著差异表达。
总体而言,这些结果提示:BGC 编码的“化学工具”很可能不仅参与维持口腔生态稳态,也可能在疾病发生发展过程中起到推动作用。
口腔代谢物也能通过多种方式影响宿主和菌群
至于口腔代谢物,已有研究较清楚地描述了一些“典型分子”,例如短链脂肪酸、氨基酸分解产物、挥发性硫化物和细菌素等。
它们可能通过多种方式影响宿主与菌群:例如刺激炎症、削弱组织结构;同时也能改变局部环境,让某些细菌更容易生存。部分代谢物还能像“窄谱抗菌剂”一样,只针对特定竞争者,帮助优势菌更稳地占据生态位。
相比之下,结构更复杂、合成成本更高的 NRP 和 PK 类天然产物,目前仍缺少像“常见代谢物”那样的系统整合研究。原因之一是它们通常需要更庞大的基因组装(对应更大的 BGC),代谢负担也更高,因此这些分子往往更可能承载更突出、更关键的进化与生态功能。
口腔天然产物和口腔代谢物有什么区别?
口腔产生的天然产物和口腔代谢物都可以是细菌分泌/产生的“小分子”,但在研究上侧重点不同:
1)侧重点不同
口腔代谢物:更偏“代谢产物/末端分子”的概念,通常指在口腔环境中实际被检测到的代谢小分子(例如通过代谢组学识别到的酸类、挥发性硫化物、氨基酸分解产物等)。
口腔天然产物:更偏“生物合成来源”的概念,通常指由微生物(或共生体)通过专门的生物合成通路(常见为 BGC)产出的次级代谢类小分子,常结构更复杂、更具“化学武器/信号分子”属性。
2)生成机制通常不同
天然产物往往对应明确的合成体系:例如 PK、NRP、RiPP、萜类等,背后常有成簇的基因(BGC)与关键酶(如 PKS、NRPS、萜烯合酶)。
代谢物更多反映“基础代谢+环境适应”的结果:糖酵解、氨基酸代谢、脂代谢以及厌氧发酵等都会产生大量代谢终产物,不一定需要典型 BGC。
简单比喻:代谢物更像“日常加工后的产物清单”;天然产物更像“特定工厂按配方定制的功能性化学品”。
3)结构复杂度与功能定位
天然产物通常结构更复杂、合成代价更高,常与竞争/协作、生态位塑造、抗性或抑菌等功能相关(当然也有例外)。
代谢物结构相对更“基础”,功能可能同样重要,但更常体现为改变pH、引发炎症、影响营养环境、产生气味/刺激性等。
4)是否有重叠?
有
现实中一些天然产物也会在代谢物检测中出现;但许多代谢物可能不被归类为“天然产物”,因为它们并非来自典型 BGC 的次级代谢体系,或结构/机制不满足“天然产物”研究框架。
目前得到充分表征的口腔多聚酮(PK)、非核糖体肽(NRP)及其杂合代谢物,绝大多数来自革兰阳性兼性厌氧菌——变形链球菌(Streptococcus mutans)。它虽以形成致龋生物膜著称,却也是 NRP、PK 与 RiPP 等生物活性天然产物的丰富来源。
非核糖体肽类物质以及多聚酮化合物
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下表概览本节的六类代表性分子;随后将沿“分子如何改变群落”的顺序展开。
编辑
Mutanofactin —促进口腔早期定植的天然产物
2021 年,研究人员发现mutanofactins——一类由少数变形链球菌临床分离株产生、能促进生物膜形成的脂肽。
该家族包含五种两亲性脂肽,由 N-酰基脂肪酸部分连接短肽骨架。主要代谢物 Muf-697 的末端 PK 部分含噻唑取代基;Muf-458、-539、-541 与 -607 则具有不同末端基团。机制研究表明,Muf-697 可非特异性结合于变形链球菌细胞表面,提高表面疏水性,并通过物理化学作用促进附着和后续生物膜形成。
其生物合成呈典型装配线模式:先以十碳-2,4,6,8-四烯酰链起始修饰 L-苯丙氨酸,再经两个 NRPS 模块与两个 PKS 模块延伸;新生链最终在缩合域介导的罕见末端酯化中引入 L-乳酸并释放,形成 Muf-697。装配线不同步骤的水解会产生多种旁路产物。
mutanofactin的生物合成及促进生物膜形成的能力
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanofactins能促进链球菌等形成生物膜并定植与口腔
在完成 mutanofactins 全合成并开展微生物学分析后发现,Muf-697 能促进变形链球菌及戈登链球菌、口腔链球菌等早期定植者形成生物膜,对具核梭杆菌与不动杆菌的影响则很小,提示它对早期群落构建具有选择性。
尤为关键的是,该分子能够使黏蛋白包被表面发生膨胀,从而帮助变形链球菌附着于原本难以定植的黏蛋白层。muf BGC 在早期指数生长期表达达到峰值,恰好对应初始附着的关键窗口,也支持其在多微生物生物膜建立中的作用。
Mutanocyclin与Reutericyclin —抗菌前体到功能再利用的天然产物
含四元酸(tetramic acid)的天然产物以 2,4-吡咯烷二酮核心为特征,在多种生态位中可表现抗菌、抗真菌和细胞毒性。
★ Reutericyclins具有抗菌性,还能减轻体重增长
Reutericyclins 就是一种此类化合物,最初发现于肠道微生物罗伊氏乳杆菌,由混合型 NRPS–PKS 基因簇编码,包含 A–C 三种 N 连接脂肪酰侧链长度不同的同系物。它们是强效质子离子载体,可在纳摩尔浓度破坏广谱革兰阳性菌的跨膜 pH 梯度;在小鼠中还被报道可减轻利培酮相关体重增加并引起与瘦型相关的微生物组变化。
mutanocyclin的生物合成及其生物活性
编辑
doi: 10.1146/annurev-biochem-051024-050248.
★ mutanocyclin影响免疫反应、降低变形链球菌丰度
同源 muc 基因簇在一些(约14%)已测序的变形链球菌里能找到。研究显示,带有 muc 的菌株通常不主要产出 reutericyclin,而是生成缺少脂酰侧链的 mutanocyclin。
这条脂酰侧链很关键:当它缺失时,mutanocyclin 的抑菌/杀菌能力会明显减弱——它往往只对少数口腔细菌表现出较弱作用;而 reutericyclin 则更“强势”,能在实验性的合成生物膜里显著降低接近 40 个口腔细菌类群的丰度,从而明显改变群落结构。少数仍携带 muc 的菌株也能产生 reutericyclin,但其产生量通常比 mutanocyclin 低约一个数量级。
mutanocyclin 可能被“再利用”于不同生态功能:它不仅可能影响免疫反应或屏障环境(如在 Matrigel 栓实验中降低白细胞浸润),还可能通过影响信号通路(例如调节 PKA 亚基 Tpk2 及下游 SFL1)来抑制白色念珠菌的菌丝形成。但它对生态的作用并非单向:近期多物种生物膜研究表明,mutanocyclin 可能会降低变形链球菌丰度,同时也能增强戈登链球菌、血链球菌等对变形链球菌的拮抗效应。也就是说,它更像是在塑造“群落博弈”的规则,而不是单纯地只杀一种细菌。
在机制上,reutericyclin 和 mutanocyclin都来自同一条“混合装配线”:NRPS–PKS共同参与合成,先形成带有吡咯烷-2,4-二酮核心的骨架。接着,reutericyclin的前体会先被氨基酸酰化加上特定修饰;然后由 mucF 编码的脱酰化酶把脂酰基等部分“去掉”,生成 mutanocyclin。
Mutanobactin —结构多样、功能多面的天然产物
在已表征的变形链球菌特殊代谢物中,mutanobactin 是功能谱最广的一类。对应 mub BGC 在超过 30% 的变形链球菌基因组中存在,显示出潜在的进化优势。此前研究已关注其结构、对白色念珠菌菌丝形成的抑制,以及与氧化应激耐受相关的性质。
注:迄今已发现逾 50 种同系物。Mub-A 至 Mub-D 最丰富且结构已解析。Mub-A 至 Mub-C 含有罕见的 1,4-噻氮杂环庚烷环;Mub-D 不具该结构,而有 7-甲基取代。其大环结构源于具有一定“宽容性”的 NRPS–PKS 装配线:末端还原域释放高反应性线性醛中间体,后者自发进行非酶促大环化,产生所观察到的化学多样性。
★ Mutanobactin高浓度下能抑制戈登链球菌、不动杆菌等
Mutanobactin的作用不仅限于抗氧化耐受。Mub-A、Mub-B 和 Mub-D 可抑制白色念珠菌的菌丝形成,并下调与毒力相关的 ECE1 和 SAP2;其中半数最大抑制浓度约为 5.3 μM。去除脂质侧链的截短类似物活性显著降低,说明脂质结构域至关重要。
较高浓度(通常 >50 μM)下,它们还可对戈登链球菌、不动杆菌及口腔放线菌产生抗菌作用。
★ Mutanobactin 也可能调节宿主反应
Mub-B 被报道可改变多种促炎细胞因子的水平;Mub-D 在约 5 μM 时可促进人牙髓干细胞与人骨髓干细胞的增殖和分化。
综合来看,这类分子可能同时参与变形链球菌毒力与宿主互作。但其在天然多物种口腔群落以及真实生理浓度下的具体作用仍需进一步研究。
Mutanoclumpin —协同驱动生物膜与龋齿的天然产物
最新表征的变形链球菌 NRP–PK 杂合 BGC 编码 mutanoclumpins。该途径产生两种结构不同的代谢物 MC-584 与 MC-586;二者在可能由末端还原酶域催化的最终大环化步骤分叉。
★ mutanoclumpins可能是变形链球菌致龋关键
人牙菌斑的宏基因组与宏转录组分析显示,mutanoclumpin BGC(mcg)与龋齿相关;更值得注意的是,mcg 表达与龋齿相关样本的关联强于变形链球菌自身的 16S 丰度。这一发现强调,功能活性有时比物种是否存在更能反映疾病状态。
MC-584 与 MC-586 需要共同存在,才能恢复 mcg 敲除突变体的生物膜形成,显示出双代谢物协同机制。两种化合物分别与变形链球菌细胞表面结合,并诱导不同的多细胞形态,共同构成生物膜结构。
该研究进一步提示:理解口腔致病性,不能只追踪单一菌或单一代谢物,也应解析由 NRPS/PKS 产生的生物膜代谢物之间的协调作用。
Salivabactin:—源自口腔益生菌产生的天然产物
Salivabactin 由人源口腔益生菌唾液链球菌 K12(Streptococcus salivarius K12)产生,与其知名的抗菌 RiPP 类 salivaricins 一同构成抗菌武器库;相关 BGC 均位于 pSsK12 巨型质粒上。
★ Salivabactin对多种革兰阳性病原菌具有活性
该分子在体内外对多种革兰阳性病原体表现强效活性,尤其针对化脓性链球菌(A 组链球菌,GAS)。体外对 GAS 的 MIC 约为 2 μg/mL,杀菌效力可与青霉素 G相当;它还抑制肺炎链球菌、变形链球菌和金黄色葡萄球菌。
唾液分泌素的生物合成、调控机制
编辑
doi: 10.1146/annurev-biochem-051024-050248.
在 GAS 坏死性肌炎小鼠肌内感染模型中,纯化 salivabactin 的保护效应与同剂量青霉素 G对照相当。尽管其体外对革兰阴性菌无活性,在大肠杆菌异源生产时却显示明显细胞毒性,提示跨膜转运可能限制了其对革兰阴性菌的抗生素活性。
注:salivabactin 由 sar 基因簇编码的 trans-酰基转移酶型 PKS–NRPS 杂合装配线合成,核心酶包括 SarD、SarE、SarF、SarG、SarH 和 SarJ。异源表达及纯化酶体外重构证明,这六种酶构成合成所需的最小机器。其末端硫酯酶域属于新亚家族,可连续催化水解、脱羧和 β-羟基消除,生成决定其独特结构的末端二烯部分。复杂的合成机制体现了唾液链球菌 K12 作为多功能抗生素生产者的潜力。
Enterobactin —一种可作为高效铁载体的天然产物
黏液罗氏菌(Rothia mucilaginosa)是常见口腔成员,近年被证实为首个产生儿茶酚型铁载体 enterobactin 的口腔共生菌;此前,人们认为该分子主要局限于致病性肠道细菌。Enterobactin是自然界已知铁亲和力最高的分子之一。这种超高亲和力使细菌即使在宿主以封存铁为防御策略时也能获取铁,因此与微生物竞争和宿主营养免疫调节密切相关。
★ 罗氏菌产生的enterobactin特异性影响不同链球菌
基因组学、代谢组学和核磁共振分析共同证实:黏液罗氏菌 ATCC25296 可在营养受限条件下通过 NRPS 途径合成 enterobactin。尽管其 BGC 与大肠杆菌同源性很低,仅 NRPS 基因与大肠杆菌 EntE–EntB 融合蛋白有约 41% 相似性,但 NMR 显示口腔来源产物保留典型结构——由2,3-二羟基苯甲酰-L-丝氨酸构成的环状三聚酯。
类似 BGC 还存在于龋齿罗氏菌(Rothia dentocariosa)与空气罗氏菌(Rothia aeria),提示该途径在口腔罗氏菌属中较广泛。初步研究显示,黏液罗氏菌来源 enterobactin 可间接对抗致龋变形链球菌与致病金黄色葡萄球菌,同时又对共生菌产生高度物种特异性作用:唾液链球菌与戈登链球菌受益,口腔链球菌生长降低,而血链球菌不受影响。
小编的话
本节围绕变形链球菌及口腔共生菌的 NRPS–PKS 杂合代谢物展开:mutanofactins 用于“早期粘附与生物膜形成”,mutanocyclin/reutericyclin 则在“抗菌与免疫调节”之间切换,而 mutanobactin、mutanoclumpin 进一步指向更复杂的功能协同。
值得注意的是,许多现象并不完全由单一菌种决定,反而更受关键代谢物的表达水平牵引:当 BGC 活性与龋齿相关性强于 16S 丰度时,疾病更像是被代谢网络驱动而非单纯被物种“占领”。小编认为,未来口腔致病机制研究不应只追踪“谁来了”,还要追问“它在什么营养与生态压力下,用了哪些物质”。这样才能真正理解天然产物如何把共生转化为致病。
目前我们已经弄清并能“点名”的口腔 NRP/PK 天然产物其实只是很小的一部分。原因在于:口腔里很多微生物的基因组体量不大,通常只有约2–3 Mbp;而一些天然产物“生产能手”(如链霉菌、伯克霍尔德菌)常见基因组能达到约 7 Mbp。基因组更小,往往意味着潜在的 BGC(生物合成基因簇) 可能也相对更少。
不过,即便在这种“基因空间更紧”的情况下,NRP/PK 的基因簇仍然占了不小的比重,这说明它们很可能并不是多余的装饰品,而是对生存与适应很重要、也很有进化价值。
基于下面对变形链球菌、罗氏菌属、具核梭杆菌这三类口腔关键菌群的梳理,我们可以得到一个更清晰的认识:口腔天然产物并不只是由少数“已经被命名的致龋分子”构成,而更像是一套由许多仍在等待解析的 NRPS/PKS 基因簇 共同组成的化学工具箱;这些产物会在不同的生态位、不同的时间节点被“启动”,从而一起塑造口腔群落的状态。
变形链球菌:未表征的调控潜能
除前述已知代谢物外,变形链球菌还携带多个未表征的 NRPS/PKS BGC。代表性例子包括 mutantioxidin BGC(mao)和 BGC2。
★ mao有助于变性链球菌的氧化应激耐受
2010 年对 UA140 和 MT4653 菌株的研究发现,mao 编码一种与氧化应激耐受相关的黄色色素。
mao 约存在于20% 的变形链球菌分离株,并在植物相关乳酸乳球菌及鼻腔定植表皮葡萄球菌中发现同源 BGC。破坏 mao 的变形链球菌突变株暴露于 O2 或 H2O2 时滞后期延长、倍增变慢,提示 mutantioxidin 与氧化应激耐受有关;乳酸乳球菌 KF147 同源 BGC 中 4′-磷酸泛酰巯基乙胺转移酶基因缺失也会显著降低细胞在氧化压力下的存活能力。
★ BGC2可能参与生物膜形成后的功能调控
BGC2 也是一套“基因配方”,由18个基因协作组成,属于 NRPS–PKS 这种混合型合成系统,且常常和 mutanofactin 的 BGC1 同时存在。两者的启动时间不一样:BGC1 更偏向于在细菌刚开始“贴上去”形成附着时就表达;而 BGC2 往往在生物膜逐步建立、进入后期时表达明显增强。
不过,研究者通过敲除 BGC2 发现,生物膜的总体结构和稳定性并没有明显改变。这提示 BGC2 可能并不只是“搭建生物膜本身”的关键零件,而更可能参与生物膜形成后的某些调控或功能细节。
代表性未表征的非核糖体肽类及聚酮类化合物BGCs
编辑
doi: 10.1146/annurev-biochem-051024-050248.
下一步就是弄清 BGC2 主要产物是什么,从而更好理解它究竟在发挥什么作用,以及为什么在同一菌株里 BGC1 与 BGC2 会一起共存?
Rothia:与健康相关、蕴藏着丰富的天然产物潜能
罗氏菌属(Rothia)是人类口腔与呼吸道常见的非运动性、不产孢、革兰阳性球杆菌,以兼性厌氧方式生长。口腔中较常见的三种为空气罗氏菌(R.aeria)、龋齿罗氏菌(R.dentocariosa)和黏液罗氏菌(R.mucilaginosa):前两者多见于牙菌斑,黏液罗氏菌则是舌背微生物群的重要成员,可形成广泛斑块。
尽管 Rothia 可在临床感染中作为机会性病原体出现,但它通常是健康口腔的关键组成,丰度往往与牙周病负相关;黏液罗氏菌和空气罗氏菌常见于低龋人群,而龋齿罗氏菌则检出于高龋人群。空气罗氏菌还被提出可作为还原硝酸盐的益生菌,与硝酸盐益生元组合用于牙周炎干预。
★ Rothia 潜在天然产物助力口腔稳态
基因组挖掘揭示其天然产物能力远比预期丰富。对 155 个 Rothia 基因组的比较研究发现,80% 至少携带一个 BGC,并将 NRP BGC 分为四个家族。其中一个主要家族是缬氨霉素抗生素 BGC;另一类为见于人源黏液、龋齿和空气罗氏菌的 enterobactin BGC。
研究还发现一种在 Rothia nasisuis与Rothia nasimurium 中常见的新型 enterobactin-like NRP BGC:它虽与 enterobactin BGC 共享保守基因,却编码不同 NRPS 核心,因而被推测产生结构不同的金属结合代谢物以促进定植。
此外,一株来自人类口咽的龋齿罗氏菌对致病奈瑟菌具有明确抗菌活性,其基因组包含六个 BGC,包括 enterobactin BGC 与一个 II 型 PKS BGC。这些线索表明,NRPS/PKS 可能是 Rothia 适应口腔微环境的重要组成;其编码代谢物的结构解析,有望阐明微生物—微生物与微生物—宿主互作的分子基础。
具核梭杆菌:生物膜“桥梁菌”的新兴合成潜力
具核梭杆菌(Fusobacterium nucleatum)既是人类口腔常见成员,也与牙周疾病相关,是一种革兰阴性、长杆状厌氧菌。它在口腔生物膜中扮演“桥梁菌”:连接早期和晚期定植者,促进生物膜成熟与稳定。
★ 健康相关梭杆菌亚种的NRPS产物潜能
它可与链球菌、放线菌等早期定植者,与韦荣菌、放线杆菌、拟杆菌、二氧化碳嗜纤维菌(Capnocytophaga)、卟啉单胞菌等晚期定植者,以及白色念珠菌共聚集。不同亚种与健康/疾病的关联也不相同:虽然F.nuclearum的亚种集中在牙周病的部位,但F.polymorphum和F.vincentii的亚种通常存在于健康的口腔中。
其遗传与代谢多样性仍刚开始被解析。泛基因组研究显示,天然产物 BGC,尤其 NRPS 编码簇,存在亚种特异性分布:NRPS 簇 1 在各亚种中高度保守,而另一个 NRPS 簇 2 则同时存在于多形亚种与文森特亚种。鉴于这两种亚种在健康口腔中的常见性,解析其 NRPS 产物及功能,可能为理解其潜在健康贡献带来帮助。
小编提醒
现有研究表明,口腔微生物虽因基因组较小而携带的 BGC 数量有限,但 NRPS/PKS 基因簇仍在多个关键菌群中稳定存在,说明其产物可能具有重要的生态价值。
变形链球菌的 mao 与 BGC2 分别可能参与氧化应激耐受和生物膜后期调控;罗氏菌的相关基因簇可能通过金属获取、抑制竞争菌等方式促进定植并维持口腔稳态;具核梭杆菌中呈亚种特异性分布的 NRPS 簇,则可能与健康或疾病相关生态位的分化有关。
由此推测,口腔天然产物的作用并非局限于“抗菌”,而可能涉及应激防御、营养竞争、群落交流及宿主互作。未来应结合代谢组学、空间转录组学和基因敲除实验,明确这些基因簇在特定时间与微环境中的产物及功能,从而将“基因组潜力”真正转化为对口腔生态机制的理解。
与口腔菌群检测的潜在衔接:从“群落图谱”走向“功能假设”
这篇文章最重要的一点在于,把关注点从“哪些菌变多或变少”推进到“哪些功能正在被表达、哪些化学分子正在改变生态位”。因此,若将谷禾口腔菌群检测作为观察口腔微生态的入口,其结果可在不越过检测能力边界的前提下,被组织为以下逐层递进的解释框架。
编辑
具体而言,若检测结果提示变形链球菌相关生态位发生改变,可在研究层面提出与 mutanofactin、mutanocyclin、mutanobactin 或 mutanoclumpin 相关的生物膜形成、应激适应和跨物种互作假设;若罗氏菌相关类群处于值得关注的变化状态,则可进一步追问其铁获取与共生竞争的功能背景;而具核梭杆菌的亚种与功能簇分布,则可为“桥梁菌”如何参与群落成熟提供探索线索。这里的关键词是“提出假设”,而不是从物种丰度直接推断某一种代谢物的存在或疾病结论。
对检测解读而言,最有价值的实践并非把某一菌简单标记为“好”或“坏”,而是把样本置回生态网络:采样部位、龋齿/牙周状态、饮食与口腔环境、群落多样性、潜在功能、以及必要时的复测趋势,都应共同进入判断。与本文强调的多组学方向相一致,口腔菌群检测可作为一个初始“群落地图”;当研究或健康管理问题需要更强的功能证据时,再由宏基因组、宏转录组、靶向代谢组或空间成像逐层验证。
本文所呈现的并不是一张简单的“有益菌—有害菌”名单,而是一幅由分子互作编织而成的口腔生态图景。变形链球菌产生的 mutanofactin、mutanocyclin、mutanobactin 和 mutanoclumpins,可参与附着、生物膜构建、抗氧化与跨物种竞争;口腔益生菌唾液链球菌 K12产生的 salivabactin,展示了抗菌分子与 pH 环境、群体感应之间的精细配合;Rothia 产生的 enterobactin,则说明共生菌也能通过铁获取和物种特异性互作影响群落。NRP/PK 代谢物因此连接起生物膜、营养、竞争、宿主免疫与疾病表型,并可能借助 BGC 的水平转移和代谢“串话”跨越物种边界。
这也改变了我们理解口腔菌群检测的方式。一次检测看到的菌群丰度,更像是一张“群落地图”,它告诉我们哪些菌群可能在,却未必能说明谁正在表达功能、谁正在释放代谢物。对谷禾口腔菌群检测结果的解读,也应沿着这一思路推进:在物种组成之外,结合样本部位、临床表型与复测趋势;在检测能力允许时,再进一步关注 BGC、代谢组等功能证据。
当口腔健康被看作一个动态生态过程,成为连接群落结构、化学功能和时间变化的观察窗口。谷禾健康关注的,不只是“有哪些菌”,更是这些菌共同构成了怎样的微生态,以及它们可能参与哪些重要功能。依托长期积累的中国人群口腔与肠道菌群数据库,16S检测基础上,结合菌群结构和潜在功能代谢进行综合解读,帮助用户避免只盯着单个“有益菌”或“有害菌”,而是从整体生态和动态变化的角度理解检测结果。
从口腔到肠道,菌群检测的意义正在从“看丰度”走向“看生态、看功能、看趋势”。未来,随着代谢组学、BGC分析、转录组和蛋白等技术的发展,我们将能够更深入地回答“谁在场、谁在发挥作用、产生了什么、如何影响健康”等问题。现阶段,谷禾希望通过更丰富的人群数据库、更规范的检测技术和更清晰的报告解读,为用户建立一扇认识自身微生态的窗口,让检测结果真正服务于长期、科学、个体化的健康管理。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Loop Yao M, Dai Y, Zhang W. Natural Products from the Oral Microbiome. Annu Rev Biochem. 2026 Jun;95(1):569-593.
Ma Z , Zuo T , Frey N , Rangrez AY. 2024 . A systematic framework for understanding the microbiome in human health and disease: from basic principles to clinical translation . Signal Transduct. Target. Ther. 9 ( 1 ): 237 10.1038/s41392-024-01946-6
Huttenhower C , Gevers D , Knight R , Abubucker S , Badger JH , et al. 2012 . Structure, function and diversity of the healthy human microbiome . Nature 486 ( 7402 ): 207 – 14 10.1038/nature11234
Gancz AS , Weyrich LS. 2023 . Studying ancient human oral microbiomes could yield insights into the evolutionary history of noncommunicable diseases . F1000Research . 12 : 109 10.12688/f1000research.129036.2
Jain N , Dutt U , Radenkov I , Jain S. 2024 . WHO’s global oral health status report 2022: actions, discussion and implementation . Oral Dis . 30 ( 2 ): 73 – 79 10.1111/odi.14516
Adil NA , Omo-Erigbe C , Yadav H , Jain S. 2025 . The oral–gut microbiome–brain axis in cognition . Microorganisms 13 ( 4 ): 814 10.3390/microorganisms13040814
Peng X , Cheng L , You Y , Tang C , Ren B , et al. 2022 . Oral microbiota in human systematic diseases . Int. J. Oral Sci. 14 ( 1 ): 14 10.1038/s41368-022-00163-7
Hajishengallis G , Lamont RJ , Koo H. 2023 . Oral polymicrobial communities: assembly, function, and impact on diseases . Cell Host Microbe 31 ( 4 ): 528 – 38 10.1016/j.chom.2023.02.009
谷禾健康
普雷沃氏菌属(Prevotella)在肠道内占据着极其特殊而复杂的地位。作为拟杆菌门的重要基石成员,普雷沃氏菌广泛定植于人群的肠道、口腔及泌尿生殖道,并因其卓越的复杂植物性碳水化合物分解能力,被确立为非西方化传统高纤维饮食人群肠道微生态的核心代表(普雷沃氏菌型)。
普雷沃氏菌在医学界呈现出令人困惑的“功能悖论”与“双刃剑”效应:一方面,它被视为发酵膳食纤维、合成保护性短链脂肪酸并维护宿主代谢与黏膜稳态的基石有益菌;另一方面,多项临床与流行病学研究将其与牙周炎、细菌性阴道病、类风湿性关节炎、代谢综合征以及胃肠道恶性肿瘤的恶化直接关联。
这种“天使与恶魔”并存的矛盾现象,使普雷沃氏菌属成为微生物学界最引人入胜、也最具转化挑战的研究对象之一。
随着宏基因组学与高通量测序的普及,人们逐渐解开了其“属水平丰度”背后的复杂性。研究者发现,普雷沃氏菌属并不是一个功能完全一致的整体,不同物种、不同菌株之间在碳水化合物利用、黏液降解、代谢产物生成、宿主黏附以及免疫调控等方面存在显著差异。换言之,“普雷沃氏菌增多”本身并不能直接等同于健康,也不能简单地被视为疾病标志。
菌株、饮食、群落、位置
决定功能方向的第一层,饮食提供了什么底物
微生物的功能都需要底物。一个拥有复杂多糖发酵能力的菌株,生活在富含阿拉伯木聚糖、果聚糖和其他可发酵纤维的肠道里,与长期生活在低纤维、高脂肪、高动物蛋白环境中的同类,代谢状态并不相同。
欧美人群的多是高脂代谢菌株,东亚人群多为谷物纤维代谢菌株。
同样一套代谢机器,输入不同,输出自然不同
高纤维饮食提供大量植物多糖(长期摄入全谷物、豆类、根茎、蔬菜等食物),容易把整个生态系统的碳流推向发酵和短链脂肪酸网络。
西方化饮食则改变可利用底物结构(高脂、高动物蛋白、低纤维饮食),也改变胆汁酸、黏液层、氧化还原状态和菌群竞争关系。
注:其他因素比如肠道转运速度会影响细菌可利用底物和停留时间;黏膜通透性决定细菌是否容易接触免疫系统;胆汁酸组成改变不同菌的竞争优势;慢性炎症提高硝酸盐、ROS 等电子受体水平;抗生素会突然清空部分竞争者;质子泵抑制剂改变胃酸屏障…这些背后都是很具体的一整套适合某些菌株生存的宿主环境。
决定功能方向的第二层,“邻居”改变它发挥作用的方式
真实肠道里没有任何细菌独自生活。
普雷沃氏菌周围可能是具核梭杆菌,也可能是普拉梭菌;可能处在慢性炎症已经形成的菌群网络中,也可能生活在一个短链脂肪酸生产和交叉喂养高度活跃的稳定社区里。
谷禾凭借专利菌群注释方法,可以基于菌群结构来精细化推断区分近似菌种,实现普雷沃氏菌的细分分型。
它所在生态网络允许什么样的代谢关系存在
如果P. intermedia与Fusobacterium nucleatum同时富集,炎症信号、上皮屏障破坏和免疫抑制可能相互叠加。反过来,普雷沃氏菌产生的乙酸、琥珀酸等中间代谢物,也可以成为其他共生菌的底物,经交叉喂养继续转化为丁酸。
这时候,即使两份肠道菌群检测报告同时都显示“Prevotella丰度占比10%”,其生态含义就不同了。
编辑
决定功能方向的第三层,它住在哪里,决定它面对什么生态位
微生物拥有自己的基因组,但它表现出来的功能,是基因组与所在组织共同“计算”的结果。
P. intermedia在牙周袋里,与它出现在健康结肠腔内,并不是同一件事。
牙龈沟有血红素、炎症渗出、氧化还原改变和持续的组织损伤;
结肠则有厚厚的黏液层、极低氧环境、不同的碳源以及高度组织化的黏膜免疫系统。
食物底物、短链脂肪酸、琥珀酸等
它的核心竞争力,是处理别人吃不动的复杂碳水
普雷沃氏菌属最值得关注的基础生物学,是它对复杂碳水化合物的处理能力。
很多普雷沃氏菌属的基因组里存在成套的多糖利用位点(Polysaccharide Utilization Loci,PULs)。
简单说,一套 PUL 不是单独的一种酶,而是一整套从“识别-抓取-切割-运输-继续降解”串在一起的系统。
外膜上的 SusD 样蛋白负责识别特定多糖,邻近糖苷水解酶把大分子切成较短片段,SusC 类转运蛋白再把寡糖送进周质空间,后续脱支酶和水解酶继续拆解,最终送入中心碳代谢和发酵网络。
因此,高纤维饮食与普雷沃氏菌属丰度之间的关系,本质上是一场生态选择——谁最擅长利用每天源源不断进入肠道的底物,谁就更容易获得增长优势。
高纤维饮食之后,看这些底物最终被怎样利用
复杂多糖经普雷沃氏菌处理之后,可以进入琥珀酸途径,生成乙酸、丙酸等代谢产物;某些与保护性表型相关的菌株,如P. melaninogenica、P. rothiae,又与丁酸相关的代谢网络联系在一起。
这些代谢物随后被宿主上皮吸收,也可能被其他细菌继续利用。
这意味着,“普雷沃氏菌属丰度上升”只是生态变化的第一层。再往下一层,需要看它是否伴随丙酸、丁酸等功能产物增加;继续往下,还可以观察宿主屏障、免疫细胞和代谢表型是否随之改变。
这也是为什么,单纯说“吃纤维可以增加某一种菌”其实略显粗糙。更需要观察的是,碳最终流向哪里。
发酵能力相似,代谢输出可以完全不同
琥珀酸在这里尤其有意思。
它既可以是细菌代谢网络中的正常中间产物,也可以在特定失衡状态下大量积累。研究表明,过多琥珀酸进入上皮细胞后,可影响 HIF-1α 稳定性以及细胞应激状态,并进一步牵动内质网应激和炎症反应。
于是,一个原本属于“碳水发酵”的代谢节点,开始与上皮损伤和慢性炎症连接起来。
这就是微生物代谢研究里一个很重要的思维方式:同一种代谢物,在不同浓度、不同组织位置以及不同宿主状态下,可能产生完全不同的生物学效应。
短链脂肪酸如此,琥珀酸也是如此。
P. copri 的争议,还提示了另一条代谢分叉:支链氨基酸
在部分菌株中,与亮氨酸、异亮氨酸等支链氨基酸合成相关的基因更丰富;在特定饮食和宿主代谢背景下,这类代谢能力被认为可能参与胰岛素抵抗相关表型。
也就是说,讨论P. copri时,还需要看“它是哪一个株系、携带哪些代谢模块”。
从复杂多糖到短链脂肪酸,从琥珀酸到支链脂肪酸,普雷沃氏菌更像一个具有高度可塑性的代谢平台。
环境决定哪一套程序获得优势。
想了解更多细节的朋友可以滑动阅览:
普雷沃氏菌属于拟杆菌门、拟杆菌纲、拟杆菌目、普雷沃氏菌科,多为革兰氏阴性、无芽孢、无鞭毛的专性厌氧杆菌。
其外膜含 LPS;部分物种具有 IX 型分泌系统(T9SS),可将黏附蛋白、蛋白水解酶及其他底物转运至细胞表面,部分分子也可通过外膜囊泡(OMVs)进入周围环境。
不同物种和菌株基因组差异较大,部分菌株还携带 β-内酰胺、大环内酯、四环素相关抗性基因及可移动遗传元件。
对于理解炎症和菌株安全性,以上这些结构特征也很重要。
<向上滑动阅览>
前面这些菌株、饮食和群落差异,最终会落到宿主身上。
在高膳食纤维环境中,部分 Prevotella参与复杂碳水发酵,产生乙酸、丙酸、琥珀酸等代谢物,并通过交叉喂养支持其他产丁酸菌,从而提高整个群落的短链脂肪酸输出。增加的丁酸等短链脂肪酸,有利于维持肠屏障和免疫稳态。
编辑
另一方向上,某些促炎相关Prevotella 菌株可以通过 LPS 和其他微生物组分激活TLR4/NF-κB、TLR2-Th17-IL-17 等炎症通路;琥珀酸等代谢变化还可能增加上皮应激和屏障损伤。持续的炎症与屏障破坏相互强化,局部环境便逐渐从短暂免疫反应转向慢性炎症。
编辑
doi.org/10.3389/fonc.2026.1855577
当这种促炎状态长期存在,它又会怎样进入肿瘤生态?
从单向作用到生态反馈
肿瘤组织自己就是一个特殊生态位。
这里有缺氧、有坏死、有异常血管、有代谢重编程,还有大量功能失调的免疫细胞。这样的环境可以反过来筛选适合在其中生存的细菌。
编辑
某些细菌促进炎症和组织损伤,组织变化又为这些细菌提供新的生态位;细菌继续改变局部代谢与免疫状态,肿瘤细胞也在不断重塑自己的周围环境。
因此,在肿瘤组织里发现普雷沃氏菌属,既可能记录肿瘤生态环境已经发生改变,也可能意味着其中某些菌株参与维持这种环境。
编辑
doi.org/10.3389/fonc.2026.1855577
它经常和具核梭杆菌一起出现
结直肠癌微生物学里,具核梭杆菌(Fusobacterium nucleatum)已经被研究多年。
它拥有FadA、Fap2等黏附和免疫调节相关分子,可以影响 E-cadherin/Wnt-β-catenin 通路、NK/T 细胞功能以及髓系抑制细胞募集。
有意思的是,一些肿瘤样本中 P. intermedia、P. nigrescens 等口源性普雷沃氏菌会和具核梭杆菌共同富集。
两者一旦进入同一个病灶,作用可能发生叠加
具核梭杆菌提供强黏附和免疫逃逸能力
普雷沃氏菌则可能增强蛋白水解、炎症和屏障破坏;
NF-κB、NLRP3、Wnt/β-catenin、STAT3 等信号网络因此彼此衔接。
编辑
doi.org/10.3389/fonc.2026.1855577
这类“微生物协同致癌”证据在体外实验、动物研究以及部分人群观察中都已出现,但人体层面的完整因果链仍需要纵向和干预研究继续验证。
这其实比寻找“某一种癌菌”更接近肿瘤真实生态:
肿瘤里值得研究的单位,很可能不是一种菌,而是一组协同工作的微生物网络。
口-肠轴与异位定植
每天都有大量口腔细菌随唾液进入消化道。大多数时候,它们难以在稳定的下消化道生态系统里建立长期优势。
但牙周炎、胃肠屏障损伤、局部炎症、药物和菌群失衡会改变这一门槛。
编辑
doi.org/10.3389/fonc.2026.1855577
P. intermedia、P. nigrescens等口源菌就可能通过吞咽进入消化道,也可能在牙龈屏障破损时进入循环。对于已经具有坏死、缺氧和黏膜结构破坏的肿瘤组织,这些菌获得了定植机会(此前没机会定植)。
微生物影响肿瘤,还深入到表观遗传层面
慢性炎症不仅改变细胞因子浓度,也会影响宿主细胞的转录和表观遗传程序。在普雷沃氏菌相关研究中:
一条路线涉及 DNA 甲基化
长期 IL-6、IL-1β 等炎症信号可影响 DNMT 等 DNA 甲基转移酶,从而改变包括 CDKN2A/p16 在内的抑癌相关基因表达。
另一条更前沿的路线涉及 m6A RNA 修饰
已有研究把普雷沃氏菌相关炎症环境与METTL3 上调联系起来;METTL3 介导的 m6A 修饰可以改变 c-Myc、STAT3 等转录本稳定性,也与 PD-L1 mRNA 稳定性及免疫逃逸相关。
它出现在癌变过程的哪一步?
结直肠癌研究里,P. intermedia 是目前相对受关注的物种之一。
2022 年的一项研究在结直肠腺癌组织中发现P. intermedia富集,并观察到它与具核梭杆菌共同存在时,对癌细胞迁移和侵袭表现出叠加效应。随后还有研究在控制肠道转运时间、粪便钙卫蛋白和 BMI 等混杂因素后,继续观察到P. intermedia与结直肠癌的相关性。
这类证据开始连接组织定位、菌群协同和功能实验。可人体癌变往往跨越十几年甚至几十年。研究者最终需要解决的是时间顺序:菌群改变是在腺瘤之前就出现,还是在肿瘤改变局部环境之后才显著富集?它参与的是癌变启动、进展、免疫逃逸,还是治疗耐药?
这也是为什么纵向队列尤其关键。
胃癌、口腔癌、食管癌,呈现出不同的组合
胃癌中,肿瘤来源的P. intermedia 与疾病进展之间已有研究联系,其中包括 PLIN3 等宿主通路。
口腔鳞状细胞癌的证据更贴近其原生生态位。患者-对照研究发现P. intermedia检出差异,实验研究则观察到其可促进肿瘤细胞增殖、侵袭和炎症因子释放;较新的研究还把肿瘤内P. intermedia与 ISG15、M2 型巨噬细胞极化和免疫抑制微环境连接起来。
食管鳞癌研究中,P. nigrescens 感染与 Ki67、p-STAT3 等增殖信号升高有关。
Prevotella 并不只生活在肠道。口腔、阴道等黏膜部位都可以发现这个菌属,而不同部位提供的营养、氧化还原状态、邻近菌群和免疫环境并不相同。
为什么某些普雷沃氏菌在牙周袋这样的环境里容易扩增?
口腔是普雷沃氏菌属最重要的生态位之一。特别是P. intermedia、P. nigrescens 等产黑色素厌氧菌,与牙周疾病长期联系在一起。
牙龈炎症时,组织出血增加,血红素和铁资源大量进入牙周袋;与此同时,局部氧化还原环境下降,更适合厌氧菌生长。
吸烟为什么也会和口腔 Prevotella 联系起来?
吸烟并不是单纯把某种细菌吸进嘴里。它改变的是局部氧化还原状态、免疫反应、唾液环境和黏膜状态,因此可以重新排列口腔微生物竞争关系。
吸烟者口腔中P. melaninogenica、P. pallens 等物种可发生富集;如果同时存在口腔卫生差、吞咽功能异常等情况,口腔厌氧菌还可能进入下呼吸道。
这里再次说明:生活方式和微生物之间的关系,往往通过改变生态位实现。
P. intermedia的血红素利用和乳铁蛋白相关铁获取能力,这些特征让它在炎症牙周袋中的竞争力明显提高。
牙周炎改变环境 → 环境选择Prevotella → Prevotella 加重局部炎症和组织破坏 → 新的营养和生态位继续释放
编辑
阴道:群落结构决定它能不能扩张
阴道微生态提供了另一个很典型的例子。
健康状态下,乳杆菌通常占据优势,并通过维持较低 pH等方式限制其他微生物扩张。
当乳杆菌减少、乳酸下降、pH 上升,这种稳定结构被打破后,Prevotella bivia等厌氧菌获得新的生态空间。
随后又会出现微生物之间的代谢互利。例如 P. bivia 与 Gardnerella vaginalis可以通过代谢物交换促进彼此生长,帮助致病性生物膜形成。
注:这和肠道里的 普雷沃氏菌和具核梭杆菌协同并不是同一个机制,却在生态学上讲的是同一件事:环境先改变竞争规则,随后微生物之间的合作进一步稳定新的失衡状态。
从黏膜到关节:影响还可以延伸到远端
环境依赖性还有一个更复杂的层面:微生物生活在黏膜,但它引起的免疫变化未必停留在原来的位置。
类风湿关节炎是其中较受关注的例子。
部分研究发现,P. copri与类风湿关节炎人群中的菌群变化存在关联,而 Prevotella相关的 TLR、Th17 和 IL-17 等免疫通路,也被用于解释黏膜微生物变化与远端炎症之间可能存在的连接。
在特定类风湿关节炎模型和宿主背景下,高纤维饮食与 P. copri甚至可能协同加重炎症。
注:营养学进入微生态时代以后,一个越来越清楚的方向,就是从“这种食物平均有什么作用”,走向:这种底物,在这个人的这套菌群里,会被谁利用,最后生成什么?
神经、过敏、IBS 、多发性硬化研究
部分儿童队列中,自闭症谱系障碍与较低 Prevotella丰度出现相关;
一些婴幼儿研究观察到P. copri定植与食物过敏风险存在关系;
多发性硬化动物研究中,Prevotella histicola 显示出增加 Treg、降低 Th17 相关炎症的潜力。
腹泻型肠易激综合征和部分慢性黏膜炎症研究又发现某些Prevotella富集。
这也说明,这个菌属的生物学意义高度依赖宿主免疫状态、组织生态位和具体菌株。
微生态研究早期,人们很自然地希望找到,哪些菌有益,哪些菌有害;少了就补,多了就杀。这很容易理解,也很方便传播。
普雷沃氏菌,也许正使我们放弃“好菌坏菌”的那套思路。
它可以出现在高纤维、短链脂肪酸丰富的肠道生态中;也可以参与 Th17 型慢性炎症。
它可以通过代谢物帮助维护屏障和 Treg 稳态;某些菌株又可以借助 LPS、T9SS、OMVs 和其他机制推动组织损伤。
它可以是人体长期共生生态系统的一部分,也可以在牙周炎、肠道失衡或肿瘤形成的新生态位中获得完全不同的功能位置。
谷禾凭借积累的海量肠道菌群样本,深度提取菌群构成结构中隐含的信息,从不同的健康轴洞察普雷沃氏菌的健康影响。基于健康轴和菌群结构,我们将全面量化普雷沃氏菌的个性化干预策略,让菌群调整更精准。
相关阅读:
肠道重要基石菌属——普雷沃氏菌属 Prevotella
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
主要参考文献
向上滑动阅览
Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75:10–45.
Dammeijer F, et al. The PD-1/PD-L1-checkpoint restrains T cell immunity in tumor-draining lymph nodes. Cancer Cell. 2020;38:685–700.e8.
Lu Z, Tang D. The dual roles of Prevotella in gastrointestinal tumorigenesis: from molecular mechanisms to therapeutic prospects. Frontiers in Oncology. 2026;16:1855577.
Wong CC, Yu J. Gut microbiota in colorectal cancer development and therapy. Nat Rev Clin Oncol. 2023;20:429–52.
Tett A, et al. Prevotella diversity, niches and interactions with the human host. Nat Rev Microbiol. 2021;19:585–99.
Fehlner-Peach H, et al. Distinct polysaccharide utilization profiles of human intestinal Prevotella copri isolates. Cell Host Microbe. 2019;26:680–690.e5.
Gálvez EJC, et al. Distinct Polysaccharide Utilization Determines Interspecies Competition between Intestinal Prevotella spp. Cell Host Microbe. 2020;28:838–852.e6.
Larsen JM. The immune response to Prevotella bacteria in chronic inflammatory disease. Immunology. 2017;151:363–74.
Hao QY, et al. Prevotella copri promotes vascular calcification via lipopolysaccharide through activation of NF-kB signaling pathway. Gut Microbes. 2024;16:2351532.
Tannahill GM, et al. Succinate is an inflammatory signal that induces IL-1b through HIF-1a. Nature. 2013;496:238–42.
Urra H, et al. Endoplasmic reticulum stress and the hallmarks of cancer. Trends Cancer. 2016;2:252–62.
Gur C, et al. Binding of the Fap2 protein of Fusobacterium nucleatum to human inhibitory receptor TIGIT protects tumors from immune cell attack. Immunity. 2015;42:344–55.
Lo CH, et al. Enrichment of Prevotella intermedia in human colorectal cancer and its additive effects with Fusobacterium nucleatum on the Malignant transformation of colorectal adenomas. J Biomed Sci. 2022;29:88.
Cogrossi LL, et al. Microbiome modulation uncouples efficacy and toxicity induced by immune checkpoint blockade in mouse multiple myeloma. Nat Commun. 2025;16:65312.
Furusawa Y, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature. 2013;504:446–50.