-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
健身房里,很多人把支链氨基酸(BCAA)当作训练前后来一勺的”肌肉饮料”;但是越来越多研究结果指向BCAA是糖尿病、脂肪肝、心血管事件的代谢预警信号。
同一种物质,为什么既被当作营养补剂追捧,又被当作疾病风险标记信号?
答案可能藏在”量”与”去向”里。
支链氨基酸(BCAA)指的是亮氨酸(Leucine,Leu)、异亮氨酸(Isoleucine,Ile)和缬氨酸(Valine,Val)这三种分子结构上带有“支链”的氨基酸。它们是人体必需氨基酸必须依赖食物摄入;它们约占人体摄入并整合进蛋白质的氨基酸总量的20%左右。
适量、通畅地被肌肉氧化利用时,它们是维持肌肉、调节能量、合成神经递质的”好帮手”;而当代谢通道被堵住、血浆浓度长期升高时,它们及其下游产物可能会反过来损伤胰岛素信号、诱发炎症和脂毒性。
目前越来越多的研究发现,血液里 BCAA 高不高,除了与饮食摄入以及肌肉、肝脏和脂肪代谢有关,还与肠道及肠道菌群密切相关。一部分肠道细菌能合成BCAA,另一些细菌则参与分解、消耗它们。
当菌群失衡导致天平向”合成”一侧倾斜时,即使吃得不算多,循环 BCAA 也可能悄悄升高。理解这条”肌肉—肝脏—脂肪—肠道菌群”的完整链路,才能真正读懂BCAA 对健康意味着什么,也才谈得上“怎么吃、怎么练、怎么查”。
下面我们从最基础的概念出发,逐层拆开这套系统。
支链氨基酸(BCAA)之所以被单独拎出来讲,是因为它们身上有两个鲜明的共同点。
▸ 结构上的”支链”:一条侧链决定了一整类代谢
普通氨基酸的侧链多是直链,而亮氨酸、异亮氨酸、缬氨酸的侧链是带分支的碳链——这正是”支链氨基酸”名字的由来。
别看只是多了一个”叉”,这个分支结构让它们在体内的分解必须走一套专属的酶系统。结构的独特性,直接决定了它们代谢命运的独特性。
▸ 必需,而且”用量大”
三种支链氨基酸(BCAA)都是人体无法自行合成的必需氨基酸。在人类膳食中,总蛋白摄入的大约 20%来自 BCAA。也就是说,只要吃的是正常比例的肉、蛋、奶、豆、鱼,每天摄入的 BCAA 量通常并不小。它们进入体内后主要有三个去向:
用于蛋白质合成:成为肌肉、器官蛋白;
进入线粒体氧化供能:在能量不足时贡献碳骨架,最终进入三羧酸(TCA)循环;
作为氮供体:为大脑合成谷氨酸、γ-氨基丁酸(GABA)等神经递质,参与非必需氨基酸的合成。
▸ 三重身份:营养、信号与”生物标志”
BCAA 区别于其它氨基酸的地方,在于它同时扮演三种角色:它既是营养底物(造蛋白、供能),又是信号分子(尤其亮氨酸,是激活 mTORC1 通路的强效”开关”,能启动肌肉蛋白合成),还是一个可被血液检测捕捉的生物标志物。
近十多年来,大量人群研究把”空腹血浆 BCAA 水平升高”与肥胖、胰岛素抵抗、2 型糖尿病、非酒精性脂肪肝乃至未来心血管事件的风险联系了起来。
总之,它们既是造肌肉的原料,也是激活代谢信号的信使——用得好是燃料,堆积起来就是风险提示。
要理解 BCAA 为什么会累积、又为什么能伤身,必须先看懂它们被分解的这条流水线。
与大多数氨基酸主要在肝脏氧化不同,BCAA 的分解主要发生在肝外组织,原因很关键:肝细胞内的支链氨基酸转氨酶(BCAT)活性很低,因此肝脏并不是分解 BCAA 的主力;真正干活的是骨骼肌、脂肪组织、肾脏、胰腺、心脏等器官。
这也是为什么一次高蛋白大餐后,血液里的 BCAA 会明显、且持续地升高——它们要运输到肌肉和脂肪里才能被处理。
1. 转氨基——BCAT把BCAA变成BCKA
分解的第一步,是由支链氨基酸转氨酶(BCAT)催化的可逆反应:BCAA 被转去氨基,变成对应的支链酮酸(Branched-Chain α-Keto Acids,BCKA)
亮氨酸→α-酮异己酸;
异亮氨酸→α-酮-β-甲基戊酸;
缬氨酸→α-酮异戊酸。
其中 BCAT2 在骨骼肌中占主导。这一步释放出来的氮,可以被用来合成谷氨酸、丙氨酸、谷氨酰胺等,参与全身的氮转运。
2. 不可逆的”开关”——BCKDH 复合物
第二步是整个分解的限速步骤,也是不可逆的”卡口”:BCKA 由支链α-酮酸脱氢酶复合物(BCKDH)氧化脱羧,生成对应的酰基辅酶 A(acyl-CoA)和 NADH。这个复合物由 E1、E2、E3 三个亚基组成,其活性受到精密的”磷酸化开关”调控:
BCKDK(支链酮酸脱氢酶激酶):把 E1α 亚基第 293 位丝氨酸(Ser293)磷酸化,使复合物失活——相当于”踩刹车”;
PPM1K(蛋白磷酸酶 1K):把同一位置去磷酸化,使复合物激活——相当于”松刹车”。
当体内 BCAA/BCKA 比例升高时,PPM1K 介导的去磷酸化增强,BCKDH 被打开、加速分解;反之,当 BCAA 不足时,BCKDK 占上风,BCKDH 被关小,节约氨基酸。这个”刹车—油门”的平衡,是决定你血浆 BCAA 高低的核心分子开关。
3. 下游去向:进入 TCA 循环,或被”改道”去合成脂肪
BCKA 脱羧后生成的 acyl-CoA 继续被加工,最终产生乙酰辅酶 A(acetyl-CoA)和琥珀酰辅酶 A(succinyl-CoA),汇入三羧酸(TCA)循环彻底氧化放能。
这条通路在能量供应上贡献可观。但请注意一个隐藏的”岔路”:乙酰辅酶 A同时也是脂肪合成(脂质从头合成,DNL)的原料。当 BCAA 分解不畅、代谢通道拥堵时,这些碳骨架就可能被”改道”用于脂肪生成——这正是过量 BCAA 与脂肪堆积之间的一条重要联系。
•关键点:BCAA 分解”卡”在哪里,决定了它的危害面。卡在第一步/第二步(BCKA 堆积),会引起胰岛素抵抗与炎症;卡在更下游(氧化不全),则可能把碳流推向脂肪生成与活性氧(ROS)。这两个”堵点”是后文大量疾病的共同底层机制。
4. 全身BCAA分解的组织分工
研究者用小分子同位素(13C)追踪技术,第一次量化了小鼠全身 BCAA 的去向,结果非常直观:
▸ 肌肉量少的人共容易BCAA堆积
人体骨骼肌承担了大约六成的全身 BCAA 分解任务,脂肪组织约两成,肝脏只占一成左右。
这个分工能解释了为什么肌肉量少、久坐、肥胖、脂肪与肝脏代谢异常的人,更容易出现 BCAA 堆积:因为最重要的”处理车间”(肌肉)产能不足或”罢工”了。
研究还发现,糖尿病状态下,BCAA 氧化会从脂肪和肝脏”转移”到肌肉,是机体为适应代谢状态的一种代偿性重排。
接下来,在讨论”BCAA 有害还是有益“之前,先要看清它们在正常生理状态下的作用。作为必需氨基酸与信号分子,BCAA 参与了人体多个核心过程。
1. 肌肉:蛋白合成、抗分解与能量储备池
骨骼肌是消耗BCAA最多、也是其发挥作用的主要组织。BCAA,尤其是亮氨酸,可激活mTORC1信号通路,促使其磷酸化下游的S6K1和4E-BP1,进而促进肌肉蛋白合成、抑制分解,并增加肌纤维的尺寸与质量。
动物研究还发现,补充BCAA可促进线粒体生物合成,并提高抗衰老分子Sirt1的表达。这些作用构成了BCAA用于运动营养和老年肌少症干预的理论基础。
不过,促进合成也有两面性:适量激活有助于增肌、维持肌力;长期过度激活mTORC1,则可能干扰胰岛素信号(后文详述)。
2. 脂肪组织:参与脂肪细胞分化、产热与”燃脂”
脂肪组织是BCAA的第二大代谢器官。正常情况下,BCAA进入脂肪细胞后,可作为脂肪细胞分化的底物,并通过单甲基支链脂肪酸(mmBCFA)途径参与脂质从头合成。
编辑
棕色脂肪组织(BAT)也是BCAA氧化的第二大场所:受寒冷刺激时,它会借助新发现的转运体SLC25A44摄取血液中的BCAA,将其用作产热底物。这一发现表明,BCAA也能直接参与能量消耗。
3. 肝脏:合成白蛋白与葡萄糖的”原料供应商”
肝脏虽不是BCAA分解的主要场所,却会大量摄取BCAA用于蛋白质合成。BCAA是合成白蛋白的重要氮源,这一点已有实验支持。
因此,临床上会为肝硬化或肝功能不全患者使用BCAA制剂,以提供蛋白合成原料,同时避免加重肝脏的代谢负担。
4. 全身:能量供应、血糖调节与免疫、神经
BCAA 参与葡萄糖代谢的调节:它们可以通过抑制丙酮酸脱氢酶复合物等环节影响糖的氧化利用;在长时间运动或饥饿时,肌肉蛋白降解、BCAA 氧化增强,为全身供能。
编辑
此外,BCAA 作为氮供体参与免疫细胞的增殖与功能维持,还参与大脑横跨血脑屏障的“谷氨酸-谷氨酰胺循环”,为神经递质的合成提供底物。这一点在后面的神经系统疾病部分还会展开。
当 BCAA 不能被及时、顺畅地代谢掉,它们在血液里的浓度就会升高,并带来一系列连锁反应。大量人群研究已经反复观察到这一现象。
1. 与肥胖与胰岛素抵抗、2型糖尿病正相关
这是证据最充分、研究最深入的一条关联。多项研究显示,血浆 BCAA水平与肥胖、胰岛素抵抗、2 型糖尿病(T2D)存在稳定的正相关,且这种关联跨越不同种族人群。人群研究还发现:
膳食 BCAA 摄入量与血脂异常风险相关,膳食异亮氨酸摄入量与BMI正相关;
缬氨酸的分解中间产物 3-羟基异丁酸(3-HIB)水平,与 T2D 和胰岛素抵抗的发病率正相关,也与胰岛素水平和 HOMA-IR 正相关;
BCAA 分解通路相关基因(如 PPM1K、BCAT2、BCKDHA)的单核苷酸多态性(SNP),与更高的血清 BCAA 水平和更高的代谢病风险相关;
反过来,与胰岛素抵抗相关的基因变异,也强烈关联更高的循环 BCAA 水平。
更重要的是,BCAA不仅是疾病的“旁观者”或标志物,也可能是致病介质——这是近年研究认识的重要转变。机制上,升高的BCAA/BCKA可损害胰岛素信号、抑制脂肪生成、诱发炎症,并导致脂毒性,尤其影响肌肉和肝脏。
2. 与脂肪肝风险存在相关性
在非酒精性脂肪性肝病(现称代谢相关脂肪性肝病,MAFLD)中,循环 BCAA 与 BCKA 同样升高。BCKA 水平与肥胖/T2D、非酒精性脂肪性肝炎(NASH)相关。
研究提示,BCAA 可通过促进脂肪细胞脂解和抑制肝脏自噬,加重肥胖/糖尿病小鼠的肝脏损伤。此外,肥胖伴肝脂肪变性人群的肠道菌群,也表现出更强的BCAA 生物合成潜力。
3. 心血管疾病
BCAA 升高与心血管疾病(CVD)风险增加相关,包括前瞻性队列研究发现的关联。机制涉及脂毒性、血管内皮脂肪酸转运异常(如 3-HIB 促进血管脂肪酸转运)以及慢性炎症。
编辑
在心肌层面,BCAA 分解的缺陷与心脏胰岛素抵抗、心脏功能受损相关。
4. 糖尿病肾病与糖尿病并发症
糖尿病肾病(DMN)是糖尿病的重要微血管并发症。一项整合了临床、菌群分类、基因和代谢物分析的研究发现:与健康对照相比,DMN 患者粪便中缬氨酸、异亮氨酸、蛋氨酸等水平更高,且这六种代谢物与临床指标的随机森林分析显示,蛋氨酸和 BCAA 是区分 DMN 组与对照组最重要的特征之一(仅次于 eGFR 和蛋白尿)。
研究还发现,DMN 患者肠道中富集的若干菌种携带更多参与BCAA 和蛋氨酸生物合成的基因——这为”肠道菌群参与糖尿病肾病发病”提供了直接证据。
5. 神经系统疾病:脑卒中与帕金森病
BCAA 与神经系统的关系呈现出复杂性,值得单独说明。
▸ 缺血性脑卒中存在显著的 BCAA 累积
一项研究发现,缺血性脑卒中患者和缺血/再灌注(I/R)模型大鼠均存在显著的BCAA累积,且与肠道菌群失调和卒中进展密切相关。
研究进一步发现,瑞士乳杆菌(Lactobacillus helveticus)和短乳杆菌(Lactobacillus brevis)受卒中影响显著;定植这两种益生菌可减轻BCAA累积,并发挥神经保护作用。
机制上,BCAA累积会激活AKT/STAT3/NF-κB通路,加剧小胶质细胞介导的神经炎症。这些发现提示,菌群失调可能通过BCAA累积和神经炎症加重卒中,也显示了益生菌干预的潜力。
▸ 帕金森病患者BCAA水平降低
与其他疾病中的发现不同,帕金森病(PD)患者的BCAA和芳香族氨基酸(AAA,如酪氨酸)水平似乎降低。一项纳入106名患者和114名对照的研究发现,水平越低,往往与病程更长、MDS-UPDRS评分更高、左旋多巴剂量更大及疾病分期更重相关。这可能与患者能量消耗增加、胃肠功能障碍影响吸收,以及左旋多巴与BCAA竞争小肠立体特异性转运系统有关。
此外,患者肠道中参与BCAA合成的菌群基因(如ilvB、ilvC、ilvD、ilvN)减少,粪便BCAA浓度也随之降低。
▸ BCAA需要在一个合适的水平,过高过低都不好
卒中患者BCAA升高并伴有菌群失调,而帕金森病患者BCAA降低、菌群合成能力减弱。这表明,BCAA与神经健康并非越高或越低越好,维持适宜水平才是关键,也体现了BCAA兼具营养作用与稳态调节需求。
6. 癌症与恶病质:因组织而异
在肿瘤领域,BCAA 的角色更显微妙。一方面,在某些肿瘤发生过程中,BCAA 分解能力的丧失会增强 mTORC1 活性、促进肿瘤发展;另一方面,肿瘤微环境也可能争夺 BCAA 供给。
编辑
doi: 10.1038/s41392-023-01569-3
而在恶病质中,BCAA 又是维持肌肉蛋白合成、对抗肌肉流失的营养支持手段。这说明在癌症与消耗性疾病的营养支持中,BCAA 的使用需要“因时、因病、因人”地权衡,而非一刀切。
编辑
doi: 10.1038/s41392-023-01569-3
注:一个必须澄清的误区:”BCAA 升高 = 吃太多 BCAA”并不成立。在很多情况下,升高是因为身体处理 BCAA 的能力(而非摄入量)出了问题——这恰恰是代谢病的一个标志。所以,看到 BCAA 指标偏高,重点不是急着”戒肉”,而是排查背后的代谢与菌群状态。
要真正理解 BCAA 与健康的关联,就得知道在肥胖和糖尿病状态下,是哪些组织”掉链子”了。答案集中在三个核心代谢器官:脂肪组织、骨骼肌和肝脏。
▸ 脂肪组织:从BCAA代谢场所→炎症的来源
生理状态下,健康脂肪组织可高效处理BCAA:通过SLC1A5、SLC3A2/SLC7A5等转运体将其摄入脂肪细胞,并将部分碳骨架转化为参与脂质合成的单甲基支链脂肪酸(mmBCFA)。此外,BCAA分解通路与PPARγ相关的脂肪细胞分化密切相关,有助于维持脂肪组织功能。
▸ 肥胖和糖尿病患者脂肪组织处理BCAA改变
然而,肥胖和糖尿病会显著改变这一过程:
分解酶减少、抑制因子增加:BCKDHA、BCAT2 等促进 BCAA 分解的蛋白在脂肪组织中减少,而负向调控因子(BCKDK、Ser293 磷酸化的 BCKDHA)增加——BCAA 分解被显著抑制;
缺氧与纤维化:脂肪组织过度增生(肥大)会加剧局部缺氧,而缺氧会抑制 BCAA 分解、减少脂肪细胞对 BCAA 的摄取,并把 BCAA”改道”推向脂质生成;
炎症恶性循环:升高的 BCAA/BCKA 会促进脂肪组织中的巨噬细胞向促炎的 M1 型极化,分泌 TNF-α、IL-1β、MCP-1 等炎症因子;而炎症又反过来抑制 BCAA 分解。两者形成”越炎越堵、越堵越炎”的恶性循环;
影响产热:BCKA 还会通过乙酰化 PRDM16 等机制,抑制白色脂肪”米色化”——也就是削弱脂肪燃烧、增加能量储存。
编辑
还有一条值得关注的自分泌环路:脂肪细胞中转运体 SLC7A10 功能受阻时,会促使 BCAA 转向生成 3-HIB;而皮下脂肪 SLC7A10 表达与 BCAA 水平呈负相关。3-HIB 正是那个与胰岛素抵抗强相关的缬氨酸中间产物。
▸ 骨骼肌:BCAA代谢能力受损后果严重
骨骼肌承担约59%的全身BCAA分解,同时也是最大的葡萄糖摄取组织,经GLUT4摄取约70%的全身葡萄糖。因此,肌肉BCAA代谢异常可能产生广泛影响。
在2型糖尿病(T2D)的早期和晚期,肌肉中的BCAA及其分解产物BCKA均会升高,这可能与BCAA分解酶表达下降有关。此外,BCAA还可能通过两种机制损害胰岛素作用:
mTORC1 过度激活:亮氨酸持续、过量地激活肌肉 mTORC1,会通过负反馈磷酸化 IRS-1(胰岛素受体底物 1),削弱胰岛素信号;
BCKA 直接抑制摄取:BCKA(如亮氨酸的酮酸)会抑制 AKT 磷酸化,从而阻断胰岛素刺激的葡萄糖摄取。
编辑
当肌肉氧化磷酸化(OXPHOS)受损时,BCAA碳流可能偏离三羧酸循环,转而促进新生脂肪生成并增加活性氧产生。因此,肌肉既可清除BCAA,也可能因代谢功能受损而成为BCAA积累和胰岛素抵抗的主要部位;其作用取决于代谢状态和运动水平。
▸ 肝脏:从代谢底物储库到脂毒性与炎症反应的放大器
尽管肝脏仅承担约8%的BCAA分解,其对全身BCAA稳态仍具有重要影响。肥胖或糖尿病状态下,肝脏BCAA分解相关蛋白减少,负向调控因子增加。BCAA及BCKA升高可通过抑制肝脏自噬、促进脂肪组织脂解等途径,加剧脂质蓄积和肝损伤。
此外,组织间还存在复杂的代谢互作:例如,棕色脂肪中BCAA衍生氮合成受阻,可能导致肝脏氧化应激增加、胰岛素信号减弱。
总体而言,肥胖或糖尿病可引发脂肪组织缺氧与炎症,并降低肌肉和肝脏中BCAA分解酶的表达,削弱全身BCAA清除能力,导致血浆BCAA/BCKA升高。二者进而损害胰岛素信号、促进炎症和脂毒性,进一步加重组织功能障碍,形成持续的代谢恶性循环。
肌肉、肝脏和脂肪组织是BCAA代谢的主要调控者,而肠道菌群也是日益受到关注的重要参与者。肠道微生物既可合成也可利用BCAA,从而影响血液中的BCAA水平。
★ 肠道菌群:BCAA合成与代谢的重要参与者
多项研究证实,肠道细菌自身拥有一套完整的 BCAA 生物合成通路。人群研究提供了直接证据:
普雷沃氏菌(Prevotella copri)和普通拟杆菌(Bacteroides vulgatus)这两种具备 BCAA 合成能力的肠道细菌,在胰岛素抵抗者体内与循环 BCAA 水平正相关;
宏基因组分析显示,在胰岛素抵抗人群中,菌群中负责 BCAA”合成”的基因表达升高,而负责”转运”的基因表达下降;
在饮食诱导肥胖(HFD)和链脲佐菌素(STZ)诱导的糖尿病大鼠中,菌群中 BCAA 生物合成基因的丰度同样更高;
在肥胖伴肝脂肪变性女性中,肠道菌群也表现出更强的 BCAA 生物合成潜力。
这些证据提示,肠道菌群合成的BCAA可被肠道吸收并进入体循环,从而影响血浆BCAA水平。因此,即使膳食BCAA摄入不变,菌群组成变化也可能导致血浆BCAA波动。
▸ 菌群与宿主的”互相塑造”
▸ 菌群与BCAA存在双向调控
肠道菌群可通过合成、消耗和转化影响宿主BCAA水平;宿主的饮食、胆汁酸和免疫状态也会塑造菌群结构。
研究表明,BCAA还可影响肠道发育、营养转运和免疫功能,促进肠道健康;富含BCAA的混合物甚至可能逆转部分年龄相关的菌群变化。因此,补充或限制BCAA的效果可能因个体的代谢和菌群状态而异。
编辑
肠道菌群既能合成也能消耗BCAA。若菌群偏向合成(如P. copri、B. vulgatus增多或相关合成基因活跃),循环BCAA可能升高;若部分具有BCAA消耗能力的益生菌(如某些乳酸杆菌)减少,BCAA也可能更易累积。因此,调节菌群可能成为影响BCAA代谢的途径之一。
▸ “菌群—BCAA—疾病”三条主线
(1)胰岛素抵抗与糖尿病:菌群的 BCAA 合成能力升高,是胰岛素抵抗人群的一个特征性变化;反之,改善菌群有助于降低循环 BCAA、改善胰岛素敏感性。
(2)糖尿病肾病:DMN 患者肠道中富集的菌种携带更多 BCAA 合成基因,其粪便 BCAA与蛋氨酸水平也更高,且这些指标在区分患者与健康人时具有重要价值。这提示菌群调控的 BCAA 可能参与了糖尿病肾病的发病或进展。
(3)脑卒中:缺血性脑卒中患者与动物模型都出现BCAA 累积,并伴随菌群失调;下调的乳酸杆菌被认为是 BCAA 累积的重要风险因素,而补回这些菌能显著缓解 BCAA 累积并发挥神经保护作用。
▸ 肠道菌群影响BCAA代谢的五种机制
肠道菌群通过哪些具体且可干预的途径影响BCAA?以下梳理五种较明确的机制。
① 直接合成与消耗:调节BCAA供给
这是最直接的一条,部分菌(如P.copri、B.vulgatus)可合成并释放BCAA,经肠道吸收后进入血液;另一些菌(如部分乳酸杆菌和链球菌)则会消耗BCAA用于生长。因此,菌群的合成与消耗平衡可能影响循环BCAA的基线水平。
② 短链脂肪酸:菌群代谢的”下游信使”
菌群发酵膳食纤维产生的短链脂肪酸(乙酸、丙酸、丁酸),是菌群影响宿主代谢的核心介质。它们的作用包括:
丁酸是肠道上皮的主要能量来源,具有抗炎作用,并调节肠屏障;
丙酸促进饱腹感、抑制肝脏脂肪合成;
SCFA 还能刺激肠道内分泌细胞分泌 GLP-1,改善血糖调控。
菌群代谢产物与BCAA也会相互影响。例如,芳香族氨基酸代谢产物苯乙酸可增强肝细胞对BCAA的利用及脂质生成;菌群发酵产生的乙酸则可能通过调节肝脏代谢,减少肝脂肪堆积。
③ “肠—肝轴”:把肠道信号送进肝脏代谢
肠道来源的 BCAA、SCFA、次级胆汁酸等经门静脉首先抵达肝脏,直接影响肝脏的糖脂代谢与 BCAA 利用。肥胖人群肠道菌群更强的 BCAA 合成潜力,可能就是通过这条轴推高循环 BCAA、加重肝脂肪变性的。
④ “肠—脑轴”:BCAA 与神经炎症的连接线
肠道菌群通过代谢物、免疫信号和神经通路与大脑双向沟通。在脑卒中的研究中,菌群失调导致的 BCAA 累积,被认为通过激活 AKT/STAT3/NF-κB 通路加剧小胶质细胞神经炎症。
而 BCAA 本身也是大脑合成谷氨酸、GABA等神经递质的氮供体,参与”谷氨酸-谷氨酰胺循环”。菌群—BCAA—神经炎症/神经递质,构成了一条真实的肠脑通路。
⑤ 菌群是影响运动应答的关键因素之一
运动带来的代谢改善因人而异,“不应答者”比例为7%—69%。这种差异与肠道菌群及其代谢物有关:应答者短链脂肪酸和GABA合成增加、BCAA水平下降;不应答者则相反。这提示,运动结合菌群调节(如补充植物化学物)或有助于改善单靠运动效果不佳者的代谢状况。
但也需注意,在饮食诱导肥胖小鼠中,补充BCAA会抵消运动对胰岛素敏感性和内脏脂肪脂质生成的改善作用。因此,健身时同时大量补充BCAA未必有益。
读到这里,你可能会困惑:BCAA 一会儿是肌肉营养,一会儿又是疾病风险,到底该怎么看?科学界对这个问题也仍在争论,但已经能梳理出清晰的框架。
少一点更好”的证据(限制 BCAA):
限制膳食 BCAA 摄入,可改善血糖控制、减少脂肪量、改善脂肪组织线粒体功能,甚至延长小鼠寿命;在肥胖和糖尿病的人与动物中,BCAA 限制也带来代谢改善。
更有意思的是,一项更精细的研究指出,限制 BCAA 的代谢益处主要来自异亮氨酸和缬氨酸,而非亮氨酸,其机制部分通过激活肝脏分泌的成纤维细胞生长因子 21(FGF21)实现——FGF21 能提升能量消耗与胰岛素敏感性。
多一点也有用”的证据(补充 BCAA):
另一方面,亮氨酸补充被报道能增强胰岛素信号、促进线粒体生物合成、减少脂质堆积、降低体重与脂肪量。在老年肌少症、肝病、某些消耗状态中,BCAA 补充又确实有益。
怎么理解这种矛盾?四个关键变量
这些看似冲突的结论,其实取决于以下几个变量:
•个体底子(代谢状态):健康人、代谢病人、老年人、消耗状态患者的“最优 BCAA 摄入”并不相同;
•三种 BCAA 各有”个性”:亮氨酸、异亮氨酸、缬氨酸对 mTOR 的活性、下游代谢产物都不一样,不宜”一锅端”;例如代谢损害的”罪魁”更可能是异亮氨酸和缬氨酸;
•氨基酸之间的”配比”:BCAA 与色氨酸、苏氨酸等的比例,也会影响干预效果;
•干预方式与剂量:是”降低总摄入””单独补充亮氨酸”,还是”限制某一种”,不同的实验设计会得出不同结论。
目前较谨慎的共识是,BCAA并非绝对的“好”或“坏”,维持稳态更重要。代谢健康者通常通过正常饮食即可;有胰岛素抵抗、脂肪肝或糖尿病者,则应关注BCAA总量与组成(尤其异亮氨酸和缬氨酸)、促进其分解并维护肠道菌群,而非只纠结于补或不补。
限制BCAA的风险:避免走极端
必须强调,无节制地限制 BCAA 同样有代价:
BCAA 是维持肌肉量与肌力的关键,尤其对本身就面临肌肉流失的老年人;
大脑中约三分之一用于合成神经递质谷氨酸的氨基来自 BCAA,低血浆缬氨酸水平与更快的认知衰退相关;
BCAA 限制还可能削弱免疫功能、增加感染易感性。
因此,任何针对 BCAA 的干预都应当是个体化的,并密切监测疗效与潜在副作用。这也再次说明,”精准、平衡”而非”越多越好/越少越好”才是正确思路。
本文的重点是把前述机制转化为明天就能实践的行动。以下建议依据现有较明确且安全的证据;涉及疾病诊断或治疗时,请咨询专业医生。
哪些人应该特别关注自己的BCAA状态?
以下人群值得留意循环 BCAA 相关指标与代谢状态:
超重/肥胖,尤其腹型肥胖的人;
已诊断胰岛素抵抗、糖尿病前期、2 型糖尿病的人;
有脂肪肝(NAFLD/MAFLD)的人;
有代谢综合征、心血管风险的人;
久坐、肌肉量偏少的人;
长期高蛋白饮食、或长期大剂量服用 BCAA 补剂的健身人群(需要评估是否有必要)。
关于”检测”:能查什么,别过度解读
在临床与研究中,可能涉及的相关指标包括:
血液氨基酸/代谢组学:血浆 BCAA(亮氨酸、异亮氨酸、缬氨酸)、BCKA、3-HIB 等;
糖代谢指标:空腹血糖、胰岛素、HOMA-IR、HbA1c;
肝胆与血脂:肝功能、肝脏超声/脂肪定量、血脂谱;
菌群检测:宏基因组/16S 测序,可评估菌群中与 BCAA 合成相关的基因与菌属(如 Prevotella、Bacteroides 等)。
需注意,BCAA代谢组学和菌群合成基因检测目前主要用于研究,并非常规体检项目。即使检测,也应由专业人士结合血糖、胰岛素和肝脏影像等综合评估,切勿凭单项结果自行判断或用药。
▸ 饮食层面:吃对结构,而不是简单”多吃/少吃蛋白”
饮食上可以这样做:
蛋白”够用即可”,不长期过量:一般健康成人按体重摄入适量优质蛋白(如约 1.0 g/kg/天上下,具体因人而异),不必为了”养生”或”增肌”长期超量摄入;已有胰岛素抵抗、脂肪肝的人尤其要注意避免长期高 BCAA 负荷;
蛋白质来源多样化:在肉、蛋、奶、鱼、豆、坚果之间轮换,避免单一来源长期过量;
大幅提高膳食纤维:全谷物、豆类、蔬菜、水果、菌菇、海藻——这是给产 SCFA 有益菌的”口粮”,也是调节菌群最有力的日常手段;
多吃富含多酚/黄酮的植物性食物:深色蔬果、柑橘、茶、桑叶、海藻等,对应 9.3 节中多种植物化学物的正向证据;
控制超加工食品与添加糖:它们不利于健康菌群与代谢,间接恶化 BCAA 稳态;
不必”谈肉色变”:BCAA 是必需营养,正常吃是必须的,重点是总量与结构,而非完全杜绝。
▸ 运动层面:激活肌肉代谢功能
有氧 + 抗阻结合:有氧运动激活 BCKDH、促进 BCAA 氧化,抗阻训练维持肌肉量与胰岛素敏感性;
规律至上:把运动当作”开启 BCAA 分解通路”的日常开关,而非偶尔突击;
运动前后慎补 BCAA:文献提示运动的同时补充 BCAA 可能抵消运动改善胰岛素敏感性的收益,对以代谢改善为目标的人尤其要注意。
▸ 菌群层面:把”合成型”扳回”平衡型”
膳食纤维与多样化的植物性食物是根本(同上);
发酵食品(无糖酸奶、开菲尔、发酵豆制品等)有助于丰富菌群;
谨慎对待益生菌:文献提到某些乳酸杆菌(如 L. helveticus、L. brevis)在卒中模型中能降低 BCAA 累积、发挥保护作用,但这类结论多来自动物模型,具体菌株、剂量与适用人群需循证,不建议自行长期大量服用”补 BCAA”或”降 BCAA”的益生菌;
慎用抗生素与不必要的药物:菌群一旦被破坏,恢复需要时间;
体重管理:减重本身就能改善脂肪组织缺氧与炎症、恢复 BCAA 分解能力。
▸ 医疗层面:把”靶向 BCAA”交给专业判断
激活 BCAA 分解的药物(如 BT2、苯丁酸钠 NaPB、部分具有 BDK 抑制作用的药物)已进入临床研究,部分显示出改善胰岛素敏感性的潜力,但仍需更大规模的人体试验验证。这些属于医生处方与研究范畴,绝不可自行尝试。
三条”最小可执行”原则:①蛋白够用不多吃,来源多样化;②纤维与植物性食物拉满,把菌群养好;③规律运动,让肌肉重新成为 BCAA 的”清道夫”,且运动时别盲目补 BCAA。
注:本文基于公开发表的科研文献进行科普解读,仅作交流参考,不作为诊断及医疗依据。个体饮食调整,请结合自身情况并咨询专业人员。
主要参考文献
Mansoori S, Ho MY, Ng KK, Cheng KKY. Branched-chain amino acid metabolism: Pathophysiologicalmechanism and therapeutic implication. Obesity Reviews. 2025;26(2):e13856.
Bifari F, Ruocco C, Decimo I, Fumagalli G, Valerio A, Nisoli E. Amino acid supplements and metabolicnealth: a potential interplay between intestinal microbiota and systems control. Genes & Nutrition.2017:12:27.
Bo T, Fujii J. Primary Roles of Branched Chain Amino Acids (BCAAs) and Their Metabolism in
Physiology and Metabolic Disorders. Molecules. 2025;30(1):56.
Iwao M, Gotoh K, Arakawa M, et al. Supplementation of branched-chain amino acids decreases fataccumulation in the liver through intestinal microbiota-mediated production of acetic acid. ScientificReports. 2020;10:18768.
Shen J, Guo H, Liu S, et al. Aberrant branched-chain amino acid accumulation along the microbiota-gut-brain axis: a new potential target for ischemic stroke. British Journal of Pharmacology.
2023;180(3):347-368.
Zhang Y, et al. Alterations of plasma branched-chain and aromatic amino acids in patients with
Parkinson’s disease and their association with gut microbiota. npj Parkinson’s Disease. 2022;8:48.
Kim JE, Nam H, et al. Gut Microbial Genes and Metabolism for Methionine and Branched-Chain
Amino Acids in Diabetic Nephropathy. Microbiology Spectrum. 2023;11(2):e02344-22.
Nie C, He T, Zhang W, Zhang G, Ma X. Branched Chain Amino Acids: Beyond Nutrition Metabolism.
International Journal of Molecular Sciences. 2018;19(4):954.
谷禾健康
产丁酸物种与内源丁酸
肠道菌群与人体健康之间,存在着一座由微生物代谢产物搭建的“沟通桥梁”,丁酸便是其中的重要成员。作为肠道微生物发酵膳食纤维、抗性淀粉等底物产生的短链脂肪酸,丁酸不仅是结肠上皮细胞的重要能量来源,还参与维持肠道屏障、调节免疫反应和局部炎症,帮助塑造有利于肠道微生态稳定的环境。近年来,丁酸在能量代谢、氧化应激及结直肠癌相关机制中的潜在作用越来越不容忽视。
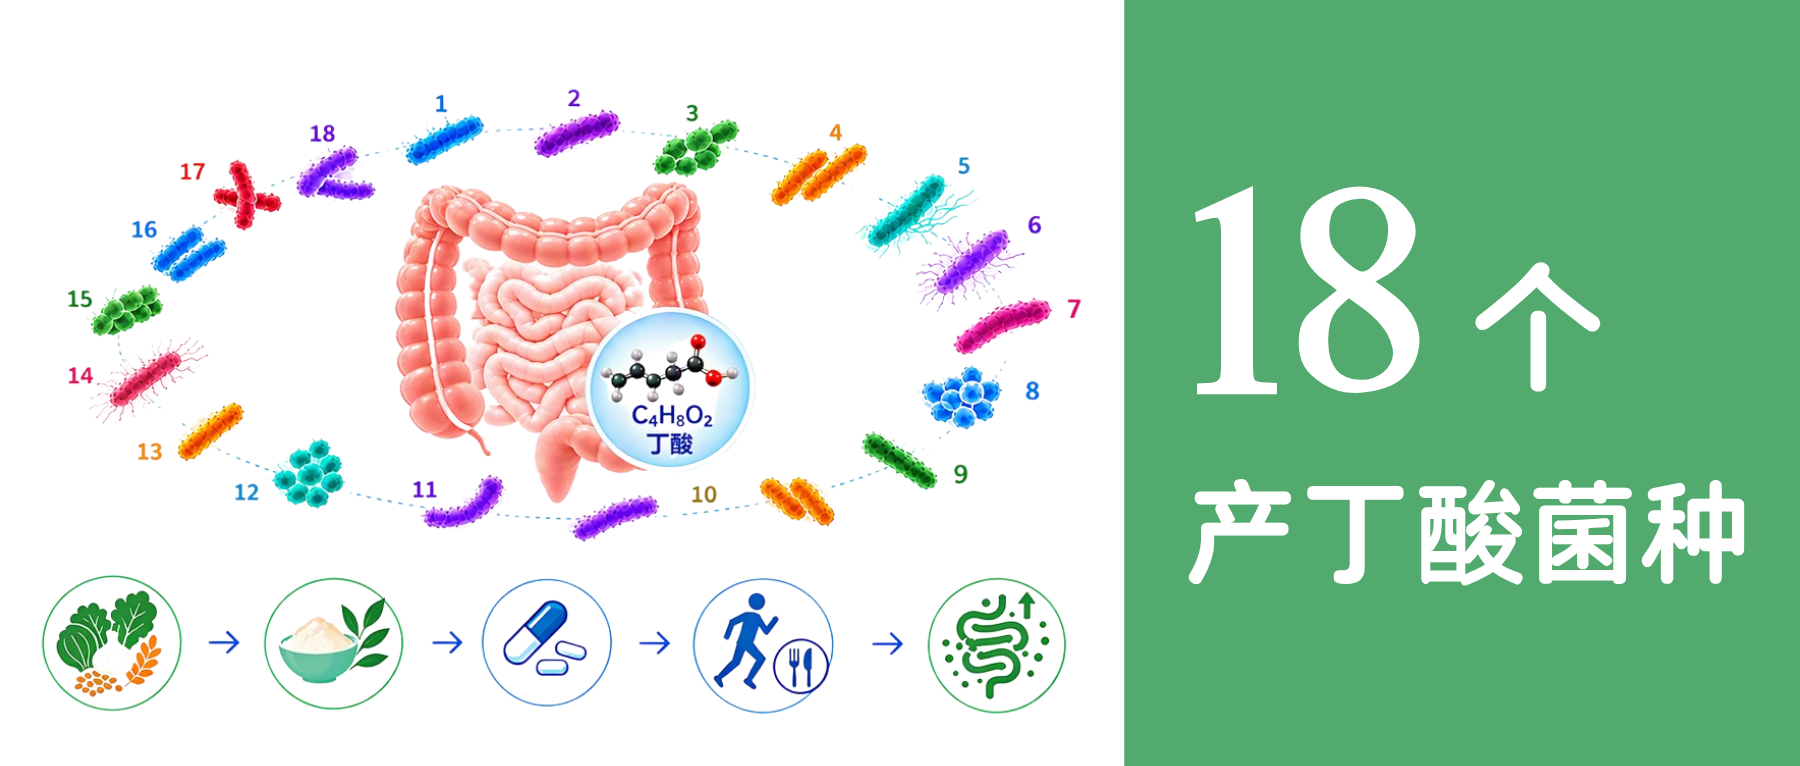
此前,我们介绍过普氏栖粪杆菌,以及罗氏菌属、厌氧棒状菌属、丁酸弧菌属等常见产丁酸菌属。这一次,我们将进一步把目光聚焦到具体菌种,认识几位值得关注的肠道重要“丁酸生产菌种”,了解它们的代谢特点、在微生态中的作用,以及与宿主健康之间的联系。
(以前单独介绍过)
人体肠道丰度最高的产丁酸菌之一,丁酸为结肠上皮供能、上调紧密连接、抑制NF-κB并促GLP-1;编码的脂肪酸酰胺水解酶参与改善儿童营养不良,可抵抗病原定植并增强肠癌免疫治疗。IBD与2型糖尿病中显著降低,与HOMA-IR、HbA1c负相关,是肠道健康风向标。
人体结肠核心产丁酸菌,发酵抗性淀粉和膳食纤维产大量丁酸供结肠上皮,改善上皮细胞谷氨酰胺紊乱、下调肠炎,与HbA1c和炎症标志物负相关。在银屑病、银屑病关节炎及克罗恩病患者肠道中显著耗竭,在非肥胖型代谢相关脂肪性肝病中反而增加,提示其变化具有疾病和宿主情境依赖性。
真杆菌属成员,产丁酸,参与膳食纤维发酵,与代谢健康指标相关,丰度下降常与菌群失调和代谢紊乱相关。与血浆高密度脂蛋白胆固醇呈正相关,发挥心血管保护作用,对维持肠道能量供应和屏障健康具有重要意义。其适量存在有助于代谢稳态,过度耗竭则提示肠道产丁酸能力和屏障功能下降。
产丁酸菌,发酵膳食纤维产丁酸,改善代谢并抗炎,与较优代谢表型相关;代谢紊乱人群中丰度下降。作为产丁酸菌群的新成员,其中菌株SR79可改善认知功能并减少神经病理损伤,显示出代谢与神经保护的双重潜力,是值得关注的有益新菌。
厌氧丁酸菌,利用乳酸和乙酸交叉喂养高效产丁酸,是肠道丁酸池的重要贡献者,能维护肠屏障、抑制炎症。参与谷氨酸代谢,与膳食纤维摄入和代谢状态相关,并参与调控人体情绪。在多种自身免疫疾病患者中丰度降低,属有益产丁酸菌。
罗斯氏菌属成员,消耗乙酸产丁酸,参与胆汁酸代谢和膳食纤维发酵,为结肠上皮供能并抑制炎症,与较优代谢表型相关。在健康人群中稳定存在,其丰度常作为评估菌群产丁酸能力的参考菌种;丰度过低提示产丁酸能力下降,与肠屏障受损、低度炎症和代谢紊乱相关,过量或与其他产丁酸菌竞争则意义有限,属有益产丁酸菌。
人罗斯氏菌,产丁酸,IBD患者中显著降低,能抑制炎症、缓解中枢神经炎症并保护肠屏障,是罗斯氏菌属代表。关键代谢产物烟酰胺核苷(NAD+前体)可预防饮食诱导的代谢紊乱,有潜在抗肥胖作用,并提高雌激素生物利用度以预防骨质疏松;其丰度是肠道抗炎能力的重要指标。
高效产丁酸菌,维护肠屏障、抑制低度炎症并改善胰岛素敏感性。2型糖尿病和肥胖中降低,与胰岛素敏感性正相关,可降低内毒素血症与动脉粥样硬化斑块负荷;在克罗恩病和溃疡性结肠炎中降低,能增强抗PD-1抑瘤疗效,动物实验补充可改善葡萄糖耐量。
菌株筛选鉴定出的新型抗高脂血症候选益生菌,产乙酸、丙酸、丁酸,具抗炎和降脂活性。动物实验证实其可改善高脂饮食性高脂血症,与较低总胆固醇、甘油三酯相关,是具降脂潜力的有益菌。丰度偏低与血脂异常和代谢紊乱相关,适量补充或富集可能有助于改善脂代谢,值得进一步临床验证。
Nat Med 2025年1167人队列鉴定为血糖控制网络的关键有益枢纽菌,能产短链脂肪酸并抑制有害菌。其减少与血糖异常和胰岛素抵抗相关,是代谢保护的重要靶点,被视为维护糖代谢稳态的核心有益菌,补充或富集具潜在代谢改善价值。
属厚壁菌门梭菌IV群的产丁酸菌,在IBD患者中丰度显著降低,动物模型中补充可减轻结肠炎、促进屏障修复,被视为有治疗潜力的益生菌候选。神经发育障碍患儿中丰度也偏低,提示其对肠道炎症敏感,是反映肠道炎症状态的敏感指示菌。
产丁酸单胞菌属成员,发酵碳水产丁酸和丙酸,维护肠屏障、抑制炎症并调节代谢,在健康人群中常见。代谢紊乱和肠道炎症时其丰度下降,提示其减少与屏障受损、炎症及代谢异常相关,是反映肠道产丁酸能力与健康状态的有益菌之一。
丁酸梭菌,是典型产丁酸益生菌,能增强紧密连接、抗炎、抑制病原并改善菌群;孢子制剂稳定性好。CBM588可改善IBS-D、预防UC术后储袋炎,2025年研究显示其可增强结直肠癌抗PD-1疗效。临床用于腹泻及抗生素相关性肠炎辅助调理;免疫低下者极少可发生益生菌相关菌血症,少数毒株可产E型肉毒毒素,菌株差异明显。
柔嫩梭菌为Clostridium leptum群代表,发酵多种膳食纤维产丁酸,是产丁酸菌群重要成员,常作产丁酸能力指标。IBD和代谢紊乱中减少,克罗恩病与溃疡性结肠炎患者粪便及黏膜中显著耗竭,剖宫产婴儿缺乏其定植。丰度平衡是维系肠上皮稳态与肠肺、肠代谢轴健康的重要基础。
伴生粪球菌,产丁酸,参与膳食纤维发酵,与肠道健康和低炎症状态相关,在健康人群中较常见。其丰度与宿主代谢和免疫状态相关,是反映肠道产丁酸能力和整体健康水平的有益共生菌;丰度过低常伴随菌群失调和代谢紊乱,维持适量水平有助于肠道抗炎和屏障健康。
产生乙酸和丁酸、具抗炎作用的肠道共生菌,2型糖尿病中显著减少,与炎症标志物负相关,动物实验补充可改善葡萄糖稳态,是评估肠道健康的重要指示菌。在语言发育迟缓儿童中显著降低,小鼠中可改善抑郁样行为,帕金森病患者肠道中丰度降低并与腹部不适相关。
以赖氨酸、果糖-赖氨酸为底物产丁酸,开辟不依赖膳食纤维的丁酸生成途径,抗炎并改善代谢,可减缓体重增加、改善血糖,并增强黏膜适应性防御机制。在低纤维饮食人群中尤具生态学意义,是该人群维持丁酸供应、维护肠屏障与黏膜免疫的重要补偿菌,也是对膳食纤维依赖度低的有益新型产丁酸菌,具备潜在的益生开发价值。
挑剔毛螺菌(旧称Eubacterium eligens),产丁酸,在动脉粥样硬化、血脂异常和IBD人群中持续耗竭,其减少提示肠道抗炎与代谢保护能力下降;能修复肠道与血脑屏障完整性、抑制神经炎症以减轻癫痫发作。但部分研究显示自闭症儿童中其丰度增加,作用具情境依赖性。
p.s.
谷禾健康肠道菌群检测报告涵盖上述物种,展示:个体检出情况、参考范围及人群检出率,帮助了解产丁酸相关菌群,为科学调节菌群、改善肠道和健康提供参考。
对于日常肠道健康,基础的策略是摄入适量、自己能够耐受的膳食纤维和抗性淀粉,调节产丁酸菌,进行内源产生丁酸,这个的健康益处更大。
益生元是直接滋养微生物群的食物,包括蔬菜、水果、豆类和全谷物。它们含有膳食纤维,可被肠道细菌发酵成丁酸盐等有机化合物。通过食物增强微生物群是促进消化系统健康和丁酸盐生成的有效且安全的方法。
高蛋白、高脂肪、同时低纤维化合物的饮食已被证明会破坏微生物组中丁酸盐的产生。在一项研究中,研究人员分析了短期饮食限制碳水化合物摄入量的肥胖参与者的微生物组,从而限制了他们对植物性膳食纤维的消耗。
在低碳水化合物饮食(每天 24 克)和中等碳水化合物饮食(每天 164 克)4 周后,短链脂肪酸的浓度低于高碳水化合物饮食(每天 399 克)。具体来说,当碳水化合物摄入量减少时,丁酸盐浓度会降低。同一项研究还发现,厚壁菌门细菌种类 Roseburia 和 E. Rectale的密度与丁酸盐浓度之间存在联系,两者都随着碳水化合物摄入量的减少而降低。
然而,以上所谓的“膳食纤维”并不能完全解决这个问题,为什么呢?
理解以下几点很重要:
1、即使是来自同一菌属的菌种,对不同底物的反应也不同。
2、某些细菌能够消化果聚糖,有些则不能。而那些可以消化的里面又有不一样的情况,其中一些能够消化短链的果聚糖,但不能消化更长链菊糖的果聚糖。
3、以上只是细菌消化不同底物能力的一个例子。由于这种变化的存在,不能一概而论。
而我们最需要的,拥有丰富多样的产丁酸菌群构成和寻找特定适合自己类型的纤维。
一项研究表明,不同类型碳水化合物的SCFA产量(单位:kJ)如下所示:
Bourassa MW, et al., Neurosci Lett. 2016
在该研究中,低聚果糖(FOS)的类型是洋葱、芦笋和香蕉等食物,而抗性淀粉(RS)则是全谷物和豆类。
另一项研究表明,补充特定猕猴桃中发现的低聚果糖可在4周内使 F. prausnitzii 增加100%。这是一项重大发现,因为目前有大量研究报告,F.prausnitzii 的相对缺乏与几种主要肠道疾病有关——最显著的是炎症性肠病(溃疡性结肠炎和克罗恩病)。
抗性淀粉2型和3型,哪种更好?
这项研究表明,从生马铃薯和高直链淀粉玉米淀粉以及全谷物中发现的阿拉伯木聚糖中提取的2型抗性淀粉含量高的日粮中丁酸产量显著增加。
在174名健康年轻人的饮食中添加马铃薯抗性淀粉后,丁酸盐产量增加。玉米、菊苣和玉米中的抗性淀粉也进行了测试,但只有当食用土豆中的抗性淀粉时,粪便中的丁酸总量才会显著增加。
对于这种类型的抗性淀粉(RS2)是否对人类“有益”存在不同的观点,有多个来源表明,RS3是一种更好的来源,因为RS2似乎可以喂养有害细菌,而RS3可以喂养有益细菌。
此外,鳄梨(牛油果)增加了能够产生短链脂肪酸的微生物数量,以及产生的总短链脂肪酸。
果聚糖(菊粉)
许多研究表明,菊粉可以增加短链脂肪酸的产量,包括丁酸盐。这可能解释了香蕉在溃疡性结肠炎和克罗恩病患者的饮食中如此有效的原因之一。然而,链长较短的果聚糖通常比链长的果聚糖(如菊粉)更容易喂养产丁酸菌。
补充菊粉虽然能够改变宿主的微生物群,但不会增加粪便丁酸水平。尽管这一结果似乎与谷物相反,但许多研究证明了补充菊粉在增加肠道短链脂肪酸生成方面的功效。
编辑
也就说,抗性淀粉和果聚糖(短链低聚果糖 和长链菊粉)在肠道中发酵时会产生丁酸盐。
对于抗性淀粉,似乎大多数研究都集中在 RS2 上。然而,在许多情况下,据报道 RS3 会产生更高水平的丁酸盐,对人类更健康。
抗性淀粉
煮熟后冷却:
土豆、红薯、米饭、意大利面、燕麦、豆类、豆类、全谷物。
原料:
青香蕉、马铃薯、马铃薯淀粉、青香蕉粉。
果聚糖
洋葱、菊苣、香蕉、朝鲜蓟、芦笋、大蒜、韭菜、西兰花、开心果和各种提取物。
由于人与人之间的常驻微生物存在显著差异,并且它们消化某些底物的能力不同,因此比较明智的选择是食用包含多种抗性淀粉和果聚糖的饮食。例如以马铃薯抗性淀粉、燕麦麸皮纤维或车前草种子或短链低聚半乳糖、长链低聚果糖和谷氨酰胺的混合物的形式短期补充,增加丁酸盐水平。
丁酸是不是越多越好?
丁酸并不总是越多越好,低浓度丁酸促进细胞增殖和生长,高浓度丁酸反而抑制细胞增殖和生长,增加肠道的通透性。
胃肠道不同部位对丁酸的耐受阈值也存在一定差异,胃和小肠对丁酸的耐受阈值低,结肠和盲肠耐受阈值高。
添加普通丁酸钠制剂过量(主要在肠道前端被吸收利用),反而造成肠道炎症、菌群失调。
更有意思的是,轻微炎症或者轻度溃疡部位添加丁酸盐可以促进肠道损伤的修复,在严重溃疡肠道部位添加,不利于溃疡的恢复,甚至加剧整个溃疡。
谷禾健康
蚊子可能不只是在“闻”你的汗。
它甚至可能在“闻”你的营养状态。
为什么有些人走到哪里都被蚊子追着咬,有些人却像隐身一样?一到夏天,“为什么蚊子偏偏咬我”就成了经久不衰的话题。
编辑
我们平时说招蚊子,很容易想到血型、体温、出汗,或者笼统地归结为玄乎的“体质”。但从蚊子的角度看,它其实是利用二氧化碳、热量和人体气味来精准锁定宿主的。而“人体气味”绝不是一个简单的变量——它是宿主自身代谢、皮脂、汗液以及皮肤微生物共同发酵出的一套复杂的“生化信号”。
一个有趣的猜想是,我们身体营养状态的变化,会不会通过皮肤菌群和挥发性代谢物,进一步影响蚊子的选择?
近日,来自清华大学、复旦大学等机构的研究团队在《Cell Research》(IF=31.1)发表研究发现,营养不足会让你对蚊子产生致命的吸引力。
研究表明,营养不良会导致宿主的皮脂腺功能减退,使皮肤表面的“天然抗菌防线”(游离脂肪酸)大幅减少。失去压制后,特定皮肤共生菌野蛮生长,挥发出大量的庚醛、辛醛和壬醛。正是这些散发着特殊气味的挥发物,精准锁定了蚊子的嗅觉雷达。
编辑
本文我们来深入了解这项研究,它不仅破解了“招蚊体质”,更为我们理解虫媒传染病提供新的视角——疾病传播不只取决于病原体和媒介,宿主自身的生理状态及其塑造的微生态,也可能成为影响传播效率的重要变量。
四种疾病媒介蚊虫,都表现出了相似偏好
研究者首先构建了营养不足小鼠模型,并使用三笼式嗅觉仪和双通道嗅觉仪,让蚊虫在营养正常和营养不足的小鼠之间进行选择。
实验测试了四种常见疾病媒介蚊虫:
埃及伊蚊(Aedes aegypti)
白纹伊蚊(Aedes albopictus)
致倦库蚊(Culex quinquefasciatus)
斯氏按蚊(Anopheles stephensi)
编辑
结果非常一致:四种蚊子都更倾向于营养不足的小鼠。
这意味着,这种现象可能并不局限于某一种蚊虫。
关键在气味
蚊子寻找宿主时,会综合使用体温、二氧化碳和挥发性气味等线索。
研究者因此继续比较两组小鼠。结果发现,营养不足小鼠与正常小鼠之间,体温和二氧化碳排放没有明显差异。
但当研究人员在嗅觉实验装置中加入除味装置,将宿主释放的挥发性物质从气流中去除之后,蚊子对营养不足小鼠的偏好消失了。
这说明,导致蚊子“区别对待”的核心因素,很可能是宿主气味发生了变化。
于是,问题进一步变成:营养不足的小鼠,到底多了什么气味?
从93种挥发性化合物中,锁定三种醛
研究者利用综合二维气相色谱—飞行时间质谱(GC×GC-TOFMS),分析营养正常和营养不足小鼠释放的挥发性有机物(volatile organic compounds,VOCs)。
一共检测到 93 种化合物。
进一步筛选后,研究人员利用触角电位技术(electroantennography,EAG),直接检测蚊虫触角对这些化合物的反应。最终,有三种挥发性醛类脱颖而出:
庚醛(heptanal)
辛醛(octanal)
壬醛(nonanal)
这三种物质均能在埃及伊蚊、白纹伊蚊、致倦库蚊和斯氏按蚊中引起明显的触角电生理反应,而且呈现一定的剂量依赖关系。
营养不足小鼠释放的三种醛明显增多
接下来,研究者使用固相微萃取—气相色谱质谱(SPME-GC/MS)对三种醛进行绝对定量。结果显示,营养不足小鼠释放的庚醛、辛醛和壬醛,约为正常小鼠的2-4倍。
编辑
当研究人员按照营养不足小鼠的浓度比例,人工配置这三种醛,再涂到已经去除皮肤菌群的小鼠身上时,蚊子同样表现出了更明显的趋向。
也就是说,这三种挥发性物质并不只是“伴随变化”,它们本身就能够驱动蚊虫行为。
动物实验之后,研究团队进一步招募了营养不足者和健康对照。
营养不足者的皮肤气味更吸引蚊子
研究中的营养不足者具有长期营养不足史,成年人BMI低于18 kg/m²,同时蛋白质摄入水平较低。最终有 24 名营养不足者和24 名健康对照参与蚊虫趋向实验,并按照性别、年龄和地区进行匹配。
为了判断蚊子究竟是不是被“气味本身”吸引,研究人员先让参与者在前臂佩戴尼龙套24小时,收集皮肤释放的挥发性物质。随后,将这些带有不同人体气味的尼龙套置于37 ℃加热装置上,让气味重新释放,再送入嗅觉仪供蚊子选择。
结果显示:即使没有真人参与,来自营养不足者的气味样本,对蚊子的吸引力明显高于健康人群。
为进一步验证,研究人员又将营养不足者和健康对照的气味样本分别置于同一名健康志愿者的两侧前臂,使两边的人体背景尽量一致,再利用双通道嗅觉仪让蚊子进行选择。结果依然相同:携带营养不足者气味的一侧更受蚊子偏爱。
人体中,同样是庚醛、辛醛和壬醛升高
研究者随后从24对受试者中随机选择12对进行挥发性代谢物分析。结果显示,营养不足者释放的庚醛、辛醛和壬醛均明显增多,其释放量大约达到健康人群的3-5倍。
注:有意思的是,庚醛、辛醛和壬醛并不是营养不足者特有的异常代谢物,它们本来就是人体皮肤挥发组的一部分。真正发生变化的,更可能是释放量和不同VOCs之间的比例。这也意味着,蚊子识别的可能是一套具有特定浓度和比例的气味组合。
研究者按照健康组和营养不足组实际检测到的比例分别配置三种醛,并涂在同一个人的两侧前臂上进行比较。结果再次显示,模拟“营养不足气味”的一侧吸引了更多蚊子。
至此,小鼠和人体实验得到了一致结果:
营养不足会改变皮肤挥发性气味谱,其中庚醛、辛醛和壬醛是重要的蚊虫吸引信号。
编辑
但这里还有一个更关键的问题。这些挥发性醛,到底是谁产生的?
而当研究人员去除皮肤菌群之后,发现营养不足小鼠和正常小鼠之间原本明显的蚊虫吸引差异消失了;与此同时,庚醛、辛醛和壬醛的释放也几乎被消除。
这说明,皮肤微生物是这些蚊虫吸引性醛类的重要来源。
葡萄球菌和链球菌增加
进一步检测皮肤微生物后,研究者发现,营养不足小鼠皮肤上可培养细菌数量超过正常组的10倍。
16S rDNA测序则发现,其中葡萄球菌属(Staphylococcus)和链球菌属(Streptococcus)明显增加。
研究人员从小鼠皮肤中分离出多种葡萄球菌,包括:
Staphylococcus sciuri
Staphylococcus xylosus
Staphylococcus pseudoxylosus
体外培养发现,这些细菌都能够产生庚醛、辛醛和壬醛。
注:从化学结构上看,这三种物质都属于直链脂肪醛,与皮肤表面的脂质代谢关系密切。皮脂中含有大量甘油三酯、脂肪酸和蜡酯,而葡萄球菌等皮肤微生物本身具有脂酶等脂质代谢能力,可以水解、利用和改造宿主提供的脂质底物。近年来的研究也越来越倾向于把皮肤看成一个“脂质驱动的微生态系统”:宿主提供脂质,微生物再对这些脂质进行二次加工,从而产生新的代谢产物。
营养不足后,到底是“产醛菌”变多了,还是同样的细菌在不同皮脂底物环境下改变了代谢通量,抑或两者同时发生?本研究已经证明相关菌株能够产醛,但具体是哪类脂质底物、哪些微生物酶以及哪条代谢路径贡献最大,还有待进一步解析。
当研究者再把这些细菌涂到小鼠皮肤上时,小鼠对多种蚊子的吸引力随之增强。
人体结果也非常相似
营养不足者皮肤上的可培养细菌同样显著增加,葡萄球菌属和链球菌属丰度升高。
研究者分离出的Staphylococcus epidermidis、Staphylococcus hominis、Staphylococcus warneri、Staphylococcus capitis、Streptococcus salivarius等,在模拟人体汗液和皮脂环境中,也都能够产生上述挥发性醛类。
编辑
那么问题来了,为什么营养不足会让皮肤菌群大量增长?
营养不足损伤了皮脂腺功能
研究者对小鼠皮肤进行了转录组、组织学和脂质分析。
结果发现,营养不足小鼠的皮肤层明显变薄,皮脂腺形态和发育出现异常,皮脂腺面积减小,皮脂含量也显著下降。
这一步很重要。因为皮脂并不只是我们日常理解中的“油”。皮脂中包含多种具有抗菌活性的游离脂肪酸,是维持皮肤微生态稳态的重要组成部分。
多种具有抗菌作用的游离脂肪酸减少
研究人员进一步进行LC-MS/MS检测发现,营养不足小鼠皮肤表面的多种游离脂肪酸下降,包括肉豆蔻油酸(myristoleic acid)、顺式-10-十五碳烯酸(cis-10-pentadecenoic acid)、丁酸、丙酸等。
体外抑菌实验显示,其中部分脂肪酸能够明显抑制此前筛出的葡萄球菌。
在人群样本中也观察到类似现象:营养不足者皮肤表面多种游离脂肪酸含量降低。
正常情况下,皮脂腺分泌的脂质和游离脂肪酸,会对皮肤微生物形成持续的选择压力。
当营养不足导致皮脂腺功能下降、抗菌脂肪酸减少后,这层“生态约束”被削弱,一部分细菌便获得了更多增殖空间。
于是:
皮脂腺功能下降 → 抗菌脂肪酸减少 → 葡萄球菌等扩增 → 挥发性醛增加。
研究者还进一步通过干预验证了这条链路:给营养不足小鼠补充相应脂肪酸后,皮肤细菌数量和三种挥发性醛均下降,对蚊虫的吸引力也随之降低。
营养不足还会提高登革病毒感染和传播效率
如果营养不足只是让人更“招蚊子”,这件事本身就已经够烦了。被叮之后的红肿、瘙痒,常常让人忍不住反复抓挠;尤其到了蚊虫活跃的季节,几只蚊子就足以让人坐立不安,甚至影响休息。
但研究者进一步发现,它还可能同时影响病毒传播的另一端。
在登革病毒2型(DENV2)感染实验中,营养不足小鼠感染后体内病毒载量更高。
与此同时,蚊子在营养不足小鼠身上的吸血率更高;这些蚊子吸血以后,体内DENV2的病毒载量和感染率也更高。
“蚊子-宿主-蚊子”传播循环被进一步放大
研究人员随后设计了一个更接近群体传播的实验。
编辑
他们分别建立营养不足小鼠占比为0%、10%和60%的三个群体,再让携带DENV2的埃及伊蚊进入其中。
结果显示,在营养不足个体占比达到60%的群体中,小鼠病毒载量更高;随后前来吸血的未感染蚊虫,其吸血率和DENV2感染率也更高。
编辑
蚊子挑人,挑的不只是“体味”,还有营养状态在皮肤菌群上留下的痕迹。这项研究揭示了,营养不足削弱皮肤的脂质防线,改变皮肤微生态,进而改变气味,让宿主更容易成为蚊子的目标。
看似是蚊子的偏爱,背后却是营养、皮肤屏障与微生物共同作用的结果。 营养不良带来的风险,可能不只在于削弱身体抵御感染的能力,也包括更容易成为蚊虫叮咬的目标。
小编点评
我们常说“弱肉强食”,而在微观层面,大自然的设计更为冷酷,疾病往往会寻找最脆弱的缺口进行精准打击。
这不仅是一项关于蚊子口味的趣味发现,更是对现代公共卫生防御体系的启示。未来值得期待的是防控思路的拓展:除了阻断蚊虫叮咬,能否通过改善营养、维护皮肤微生态,减少宿主易受叮咬的条件?
过去,医学与公共卫生多将视角局限于宿主免疫与病原体本身;而未来,精准的菌群检测与微生态代谢物图谱,将成为撬动疾病预防与健康评估的底层杠杆。
当我们能通过便携、高精度的微生态检测,在分子与菌群丰度层面提前捕捉微生态失调与代谢异常的微弱信号,传统的“被动驱蚊、发病后治疗”模式将重构。
菌群检测也不局限于肠道,皮肤、呼吸道等更细分的微生态测序与代谢物分析,将为精准评估个体的营养储备、免疫机能乃至环境适应力,提供数据支撑。
不仅是公共卫生,这套认知同样能切实赋能大众的个护与美业。当我们量化皮肤表面的微生态与代谢状态时,针对性的微生态护肤、精准营养干预将变得有据可依。
主要参考文献
Wang M, Song X, Zhu Y, Niu J, Wang G, Wang Y, Xiao H, Lei D, Wu T, Liu L, Wang P, Wang J, Cheng G. Undernutrition enhances host attractiveness to mosquitoes and transmission of mosquito-borne diseases. Cell Res. 2026 Sep 16.
谷禾健康
腐烂别样杆菌(Alistipes putredinis)属于拟杆菌门、另枝菌属的重要物种,是肠道中较具代表性的蛋白质发酵型厌氧菌。与部分以复杂碳水化合物发酵为主的结肠厌氧菌相比,其糖类利用能力相对较弱,因此其丰度可能受肠腔内蛋白质和氨基酸供给、可发酵碳水化合物的可利用性,以及其他菌群对糖类底物的优先消耗影响。当高蛋白供给、氨基酸底物丰富且膳食纤维不足时,该菌会获得相对有利的生长条件。
多项小鼠研究及小规模人体队列研究提示,A.putredinis在肠道屏障完整的情况下,可以促进免疫耐受并抑制过度炎症;而在屏障破坏和菌群失衡背景下,其定植量增加,伴随的琥珀酸相关代谢信号促进 Th17 型炎症反应。意味着当我们持续高蛋白,缺乏膳食纤维时,如果菌群失调,肠屏障受损时,该菌会转向机会扩张并促炎。
近年来的队列研究和多组学分析显示,A.putredinis丰度升高对身体活动后的体重反应,能够减轻高脂饮食中的体重增加、对代谢综合征风险、脂肪性肝病及溃疡性结肠炎等也有潜在保护作用;但同时另外的研究也指出该菌的丰度升高与抑郁、功能性便秘、焦虑和慢性疲劳等症状呈现正相关。
这种看似矛盾的结果进一步说明,A. putredinis 不能被简单归类为“有益菌”或“有害菌”,当肠道菌群检测出该菌超标或丰度过高过低时,要受检者的症状,炎症和屏障指标,以及近期饮食干预等状况综合解读。
腐烂别样杆菌(Alistipes putredinis)属于拟杆菌目下理研菌科(Rikenellaceae)的另枝菌属(Alistipes)。
该菌最早于1937年被描述为Bacteroides putredinis(”腐臭拟杆菌”,种名 putredinis 源自拉丁语”腐臭”,与其腐败代谢特征相关)。
2003年基于16S rRNA基因序列与生化特征,将其重新分类为新属Alistipes的模式种。
1. 细胞形态与培养特征
✔形态:革兰氏阴性短杆菌,两端钝圆,通常单个或成对排列;无芽孢、无鞭毛且不运动。大小约0.3–0.5 × 0.9–3.0 μm。
✔菌落特征:在哥伦比亚血琼脂上厌氧培养 96 小时后,形成灰色、湿润、细小且不溶血的菌落,大小约为针尖至 0.5 mm,表面光滑,颜色由半透明至灰白色。
✔色素:不产色素,可与产棕褐色色素的A.finegoldii、A.onderdonkii和A.shahii区分。
✔生长特性:
严格厌氧,生长缓慢,在液体培养基中生长较弱,部分条件下可产气,耐氧性较差,暴露于氧气后活菌数随时间延长而下降,120 分钟后仅少量存活;胆汁耐受,但不耐受 20% 胆汁,这一点不同于该属多数耐胆汁种。
2. 基因组特征
对模式菌株 CCUG 45780ᵀ 的全基因组测序显示 :
•染色体呈环状,全长 2,599,205 bp(约2.6Mb),GC 含量为 53.63%。
•共注释 2479 个基因,包括 2423 个蛋白质编码序列、6 个 rRNA、49 个 tRNA 和 1 个 ncRNA。
•携带13 个 Set A 核心毒力基因和28 个 Set B 毒力相关基因,主要参与黏附、抗吞噬、镁离子摄取、表面结构形成及环境适应。
•检出11 个耐药基因,主要与大环内酯类、四环素类和氨基糖苷类耐药有关,以外排泵为主要机制。
•功能注释表明,其基因主要富集于碳水化合物、氨基酸、能量以及辅因子和维生素代谢通路,显示出较强的代谢多样性。
3. 生化与代谢能力
✔关键生化表型:
编辑
✔核心代谢策略:蛋白质/氨基酸发酵
A. putredinis的显著生态学特点是采用”弱糖酵解,蛋白发酵“策略——主要发酵蛋白质和氨基酸而非碳水化合物,以此避开肠道中与糖发酵菌的资源竞争。
事实上,Alistipes 是肠道共生菌中腐败代谢通路最丰富的菌属之一,可参与组氨酸降解/THF生成、吲哚生成和苯酚生成,产生氨、H₂S、甲酚、吲哚、苯酚等腐败产物(其中部分与结直肠癌风险相关)。
✔主要代谢产物:
琥珀酸(succinate)——最主要的体外终产物,是丙酸生成的中间体,具有促炎潜能;
丙酸(经琥珀酸途径)、乙酸——供能、抗炎、调节血压。
吲哚-3-丙酸(IPA)——强抗氧化物,保护血管内皮与神经系统,通过靶向STAT3对抗饮食诱导的肥胖来增强瘦素敏感性;
吲哚乙酸(IAA)等——介导色氨酸代谢与免疫调控;
由于吲哚阳性,其丰度升高时会与肠嗜铬细胞竞争色氨酸,间接降低 5-羟色胺(血清素)合成(与抑郁、功能性便秘相关)。
靶向代谢组学显示培养上清中 9 种能量代谢物显著升高(磷酸烯醇式丙酮酸、丙酮酸、D-葡萄糖-6-磷酸等),其中仅琥珀酸具明确促炎作用 。
4. 生长环境与人群分布
✔定植部位:
主要定植于回肠末端和结肠,是耐胆汁环境下仍可定植的核心厌氧菌之一;
也可从粪便、阑尾组织、腹部及直肠脓肿、血流、尿液、腹水中分离(条件致病时);
动物来源:羊腐蹄病、农场土壤、家禽肠道(鸡盲肠中为丙酸产生菌)。
✔人群分布规律:
健康人群:普遍存在,是肠道共生菌之一;宏基因组调查显示其为 Alistipes 属中丰度最高的物种。
年龄:老年人(≥65 岁)中 Alistipes 属显著富集;值得注意的是,在长寿女性(≥90 岁)中A.putredinis、A.finegoldii、A.shahii 比年轻老年组(60–90 岁)富集约 3.2 倍,被视为健康衰老的潜在共生标志物 。该属还可垂直传播 3–4 代。
✔丰度降低相关的疾病状态:
炎症性肠病(IBD)、肝硬化、慢性疲劳综合征、焦虑、肥胖、儿童食物过敏等。
5. 耐药性与药敏谱
✔敏感:克林霉素、头孢西丁、氯霉素、红霉素、甲硝唑 ;
✔中度耐药:四环素、强力霉素;
✔临床菌株:对 β-内酰胺/β-内酰胺酶抑制剂和甲硝唑 MIC 低,对青霉素、头孢曲松、米诺环素 MIC 高 ;
基因组预测的 11 个耐药基因主要针对大环内酯类、四环素类、氨基糖苷类,以外排泵机制为主 。
临床意义:厌氧菌感染治疗中甲硝唑、β-内酰胺类仍是可靠选择;对四环素类的固有/获得性中度耐药提示该类药不适用于相关感染。
6. 与其他菌群的互作
•腐烂别样杆菌(Alistipes putredinis)与 Bacteroides fragilis、Faecalibacterium prausnitzii、Akkermansia muciniphila等短链脂肪酸产生菌协同互补;
•与链球菌属存在潜在拮抗关系(房颤患者链球菌暴增伴随 Alistipes 骤降);
•DSS 结肠炎模型中,灌胃该菌使拟杆菌门增多、放线菌门和乳杆菌属减少,并增加 肠球菌、肠杆菌、埃希菌 等机会致病菌丰度——即破坏菌群稳态;
•高脂饮食下,属内近缘种(A. finegoldii)的外膜囊泡(OMVs)含磺酰脂类(sulfonolipids)加重炎症,提示饮食-菌群互作决定其表型方向 。
腐烂别样杆菌(Alistipes putredinis)在人体健康与疾病中的作用并非单一。在阅读了众多文献后,较为一致的观点是:在代谢健康与部分正常黏膜微环境中,它相对常见;但在炎症或肿瘤相关微环境中,特定菌株或在属水平的升高可能转而表现出促炎、促病效应。在人类与动物研究中,这种“双相性”已分别与肝病、炎症性肠病、结直肠癌、抑郁以及肺癌免疫治疗反应相关。
A. putredinis 对宿主的作用具有双重性
✔抗炎通路:从溃疡性结肠炎(UC)患者优质 FMT 供体分离的 A. putredinis 菌株可经 TLR2 诱导抗炎性 IL-10 产生,抑制肠道炎症 。
✔促炎通路:Alistipes putredinis分泌的琥珀酸可作为“代谢激素”作用于宿主琥珀酸受体 SUCNR1(GPR91),稳定 HIF-1α,进而上调 IL-1β、增强 NLRP3 炎症小体活化(提高 ASC、caspase-1 及 IL-1β/IL-18 表达),促进树突细胞抗原提呈并驱动 Th17 分化,同时抑制 Treg 功能。
其基因组携带与黏附和抗吞噬相关的毒力基因(如 katA、htpB、clpP、cpsA、algI 等)。
✔双重性模型:在健康小鼠中口服该菌(10⁹ CFU/天)不引起任何病理改变(体重、血象、脏器病理、炎症因子均正常);只有当 DSS 破坏肠道屏障后(第二次打击),该菌才借机增强定植并放大炎症。
小编的话
A. putredinis的生物学效应具有明显的菌株特异性和宿主环境依赖性:
在屏障完整的肠道中,部分菌株可能通过 TLR2–IL-10 轴促进免疫耐受;而在 实验中通过DSS所致屏障破坏和菌群失衡背景下,其定植增强及琥珀酸相关代谢信号可能激活 SUCNR1–HIF-1α 和 NLRP3 炎症通路,从而放大 Th17 型肠道炎症。
意味着当我们屏障受损或菌群失调时,该菌会机会扩张促炎,因此,我们偏向该菌可能是条件共生菌,有益或有害依赖宿主环境。
1. 调节活动控制体重的效果
编辑
影响因子:11.607
来自哈佛大学的一项研究发现肠道中的Alistipes putredinis可以调节体力活动/身体活动(PA)和体重之间的关联。
✔高A. putredinis丰度人群体重增幅更小
研究人员对一项卫生专业人员队列进行了长期随访,并从中筛选一个子队列开展为期一年的深入研究:采集粪便与血液样本,检测肠道微生物及血液指标,同时记录详细的身体活动数据。分析显示,体重在长期趋势上会随年龄增长而增加;但在具有较高 A. putredinis 丰度的人群中,身体活动带来的体重增幅平均减少 2.26 kg,而在 A. putredinis 丰度较低的人群中,体重增幅平均仅减少 1.01 kg。
编辑
doi: 10.1186/s40168-023-01542-w.
✔A. putredinis调节体重反应,可能有助于代谢健康
通过功能分析推测:当A. putredinis存在时,它对 PA(身体活动)—体重反应的调节可能与多种微生物代谢途径有关,例如糖异生、脂肪酸 β-氧化、棕榈油酸生物合成和叶酸转化等。该结果提示:肠道微生物特征可能是影响体重变化及其对PA 代谢反应的重要组成部分。
研究者提出两种主要假设:其一,携带A.putredinis 可能通过改变肠道代谢,提高 PA 对抑制体重增加的有益作用;其二,较低 PA 再叠加其他外源性因素,可能增加获得 A. putredinis并进一步导致体重增加的机会。
一旦得到确认,这一发现可能带来两方面意义:第一,它支持肠道微生物调节有潜力增强 PA 在体重管理中的效果;针对个体微生物特征定制的策略,或可作为减轻肥胖相关健康风险的更可持续方案。第二,它也开启新的研究方向:寻找可提升A.putredinis 丰度、从而带来PA 相关代谢获益的方法。
尽管未观察到 PA 与 A. putredinis的直接关联,但已有证据显示,在糖尿病前期人群中,PA 干预可增加该菌;同时,十字花科蔬菜摄入也被报道与人体该类菌丰度增加有关。
2. 更低的代谢综合征风险
编辑
影响因子:6.633
在一项对1342 名受试者的横断面研究中发现,Alistipes putredinis更高丰度与代谢综合征更低风险、潜在更好的血管健康信号相关。
✔Alistipes putredinis与代谢综合征呈负相关
在对1342名中国受试者开展的大规模研究中,研究者借助宏基因组测序系统分析了健康生活方式、肠道微生物群与代谢综合征(MetS)的关系。
结果显示,Alistipes putredinis、Odoribacter splanchnicus和 Roseburia hominis 的丰度与健康生活方式呈显著正相关;同时与MetS 风险呈负相关。
Alistipes putredinis丰度更高时,微生物进行同型乳酸发酵能力的增强,血浆中的肉桂基甘氨酸和甜菜碱水平升高,这些被发现是与代谢综合征和血管健康相关的潜在微生物效应因子。
✔可能通过微生物代谢产物影响血管健康
该研究通过多组学进一步鉴定出与健康生活方式及 血管指标相关的关键微生物代谢通路和血浆代谢物。其中,Cinnamoylglycine(N-肉桂酰甘氨酸)和甜菜碱与由肠道微生物增强的同型乳酸发酵相关;同时,它们与更好的血管健康结局(如动脉僵硬、早期动脉病变、PAD)表现相关;并且这些代谢物与相关厌氧发酵产能菌(包括A.putredinis)丰度有关。
与HLS相关的微生物功能与代谢综合征存在密切关联
编辑
doi: 10.1128/msystems.01433-25
3. 脂肪性肝病中丰度下降
编辑
影响因子:4.546
✔代谢相关脂肪性肝病患者A. putredinis减少,补充后可改善症状
研究发现,在代谢相关脂肪性肝病中,A.putredinis 丰度持续下降,且与肝纤维化进展呈负相关,纤维化越重丰度越低。
在高脂饮食诱导的代谢功能障碍相关脂肪性肝病(MASLD)小鼠模型中,补充Alistipes putredinis 菌株 Ap77 后,动物体重增加受抑、肝脏甘油三酯水平下降,脂肪沉积减少,并伴随肝组织学及肝功能相关指标的改善。
✔A.putredinis可能有助于抑制炎症信号通路
补充A. putredinis 菌株 Ap77后,观察到:炎症相关细胞因子(如 IL-1β、IL-6、TNF-α)显著下降,并且健康相关细菌种类增加,提示肠道微生物群结构被重塑。研究人员认为,A. putredinis Ap77 可能通过改善肠道生态组成并抑制炎症信号通路来缓解代谢功能障碍相关脂肪性肝。
编辑
doi: 10.3390/nu17122013.
4. 溃疡性结肠炎中减少
编辑
影响因子:4.261
在溃疡性结肠炎患者中,A. putredinis的比例有所下降。而在治疗后呈现定植/丰度恢复的趋势,并通过诱导 IL-10(与 TLR2 信号通路相关)发挥抗炎作用,进而缓解结肠炎表型。
✔A. putredinis抑制炎症,促进 IL-10 产生(抗炎通路相关)
体外实验显示,A. putredinis菌株具有较强的诱导抗炎因子 IL-10活性,并且 IL-10 产生与 TLR2 信号通路有关(用 TLR2/TLR4 抑制/阻断后 IL-10 诱导能力下降)。
体内结肠炎模型中,口服给予 AP 后,结肠炎指标改善,表现为体重损失减轻、结肠长度等炎症相关表现更接近正常,支持其抗炎效应。
✔但也存在矛盾的证据:A. putredinis CCUG 45780ᵀ加重结肠炎
编辑
影响因子:2.989
A. putredinis CCUG 45780ᵀ 灌胃显著加重 DSS 结肠炎——体重下降、DAI 升高、结肠缩短、脾肿大、黏膜损伤与黏蛋白减少,TNF-α、IL-1β、IL-6、NLRP3 表达上调;机制为琥珀酸–SUCNR1 信号轴(结肠内容物琥珀酸升高、SUCNR1 表达上调)联合菌群失调 。
可能的合理解释:①种间功能差异巨大;② 菌株特异性;③ 丰度与疾病阶段依赖性(低丰度早期能促进 Treg,过度增殖时经 IL-6/STAT3 促炎);④ 饮食背景(高脂转向促炎)。
5. 可能促进乳腺癌转移
编辑
慢性应激可改变肠道菌群,促使Alistipes putredinis丰度升高,并伴随吲哚-3-乙酸(IAA)产生增加。
在患者/人群层面,研究发现乳腺癌患者中A.putredinis及 IAA 水平均可升高,且在合并严重抑郁人群中更为明显。
✔A.putredinis增多会提高IAA水平进而增加氧化应激
研究认为,应激诱导的A. putredinis增多会提高 IAA 水平,进而通过 AhR(芳香烃受体) 通路介导的氧化应激,促进癌症发生肺转移。
干预效应:使用黄芩苷(baicalin)可抑制该过程,包括降低A. putredinis丰度与 IAA 生成,从而缓解 AhR 相关氧化应激与转移表型,并增强肺部 CD8+ T细胞活性,提示其可能同时改善免疫效应。
✔可能成为癌症免疫治疗应答的预测标志
在非小细胞肺癌(NSCLC)患者中发现对 nivolumab(抗 PD-1)应答良好者 A. putredinis丰度显著升高。
6. 其他疾病关联
①食物过敏:过敏儿童中A.putredinis和A.finegoldii显著减少,SCFA 依赖的屏障完整性与免疫调节是其保护机制 。
②功能性便秘:患者肠道Alistipes显著高于健康对照,假设其过度将色氨酸转化为吲哚类,竞争性抑制肠嗜铬细胞 5-HT 合成,延长结肠传输时间。
③抑郁:中国重度抑郁症患者粪便中Alistipes 增多,机制假说:吲哚阳性菌竞争色氨酸 → 5-HT 合成减少 ;但也有研究报道抑郁中本菌减少,提示结论不一致。
④慢性疲劳综合征(ME/CFS):挪威患者中 Alistipes增加近 4 倍 。
⑤焦虑与应激:BALB/c 小鼠应激模型中Alistipes显著增加并伴行为改变 。
⑥自闭症谱系:意大利 ASD 儿童中Alistipes减少(保护性),但 PDD-NOS 亚型中最高(可能与丙酸过量产生及其神经生物学效应相关)。
7. 机会性感染风险
A. putredinis可在特定条件下从胃肠道异位至血流,尤其在老年合并消化道肿瘤或梗阻的患者中。日本一项回顾性分析报告13例 Alistipes 菌血症,其中3例为A. putredinis感染,2例合并实体瘤的老年患者死于脓毒性休克。
总体而言,腐烂别样杆菌(Alistipes putredinis)应被视为一种具有情境依赖性的肠道共生菌,而非固定意义上的益生菌或病原菌。其核心特征在于严格厌氧定植、偏好蛋白质和氨基酸发酵,以及可产生琥珀酸、短链脂肪酸和吲哚类代谢物等具有宿主信号作用的分子。
在健康肠道或代谢相对稳定的背景下,较高丰度或某些功能性菌株与较低的代谢综合征风险、较好的身体活动—体重反应、脂肪性肝病改善及抗炎性 IL-10 反应相关;但这些关联尚不能直接等同于因果效应。
相反,在高脂饮食、肠屏障受损、菌群失衡、慢性应激或肿瘤相关微环境中,特定菌株及其琥珀酸或 IAA 等代谢产物可能通过 SUCNR1、AhR 等信号轴促进炎症、氧化应激或不良结局。并且在临床上,A. putredinis还偶可发生异位并参与感染。
因此,临床或完成肠道菌群检测后,不能仅凭单一菌种判断其好坏,需结合整体肠道微生态、功能基因、代谢物谱及宿主生活方式综合评估。例如在肠道健康的人体中 Alistipes putredinis可能有益,但若纤维摄入不足、蛋白摄入过量,或是肠道屏障受损,它也可能转为有害。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Zhang Y, Xie J, Yan X, Zhao W, Xu H, Sun L, Wang H, Zhao L. The role of the Alistipes genus in intestinal inflammation, cancer, and aging: a narrative review. Front Microbiol. 2026 May 21;17:1822008.
Wang K, Mehta RS, Ma W, Nguyen LH, Wang DD, Ghazi AR, Yan Y, Al-Shaar L, Wang Y, Hang D, Fu BC, Ogino S, Rimm EB, Hu FB, Carmody RN, Garrett WS, Sun Q, Chan AT, Huttenhower C, Song M. The gut microbiome modifies the associations of short- and long-term physical activity with body weight changes. Microbiome. 2023 May 30;11(1):121.
Zhang Z, Ye B, He J, Xiang L, Li S, Zhao J, Chen W, Zhang Q, Zhao W, Yang J, Li Y, Ju J, Liu Y, Xia M. Microbial metabolites associated with healthy lifestyles in relation to metabolic syndrome and vascular health: a cross-sectional study. mSystems. 2026 Feb 17;11(2):e0143325.
Zhang S, Wang R, Zhao R, Lu Y, Xu M, Lin X, Lan R, Zhang S, Tang H, Fan Q, Yang J, Liu L, Xu J. Alistipes putredinis Ameliorates Metabolic Dysfunction-Associated Steatotic Liver Disease in Rats via Gut Microbiota Remodeling and Inflammatory Suppression. Nutrients. 2025 Jun 16;17(12):2013.
https://doi.org/10.1002/9781118960608.gbm00251Digital Object Identifier (DOI)
Ishikawa D, Zhang X, Nomura K, Shibuya T, Hojo M, Yamashita M, Koizumi S, Yamazaki F, Iwamoto S, Saito M, Kunigo K, Nakano R, Honma N, Urakawa I, Nagahara A. Anti-inflammatory Effects of Bacteroidota Strains Derived From Outstanding Donors of Fecal Microbiota Transplantation for the Treatment of Ulcerative Colitis. Inflamm Bowel Dis. 2024 Nov 4;30(11):2136-2145.
Niu M, He QY, Chen YX, Liu SM, Pan YQ, Zhu XR, Miao YL, Du Y. Alistipes putredinis CCUG 45780T exacerbates DSS-induced colitis in mice via modulation of gut microbiota and succinate metabolism. BMC Microbiol. 2025 Nov 27;25(1):786.
谷禾健康
很多克罗恩病患者都有过相似的困惑:炎症指标似乎有所下降,腹痛和腹泻却不一定完全好转;又或者明明已经规律治疗,吃东西后仍容易胀痛,肠道慢慢变得狭窄。这样的经历并不意味着患者做得不够好。而是克罗恩病涉及免疫、肠黏膜屏障、遗传、环境及肠道微生物等多重因素,而肠道纤维化正是其中最令人棘手的环节之一。
可以把肠道想象成一条既要消化食物、又要维持屏障功能以抵御细菌和外界刺激的长廊。它的内壁需要足够柔软,才能随着食物通过而舒张;也需要足够坚固,才能把细菌和外界刺激挡在合适的位置。反复炎症就像反复受伤。正常的修复本应在伤口愈合后慢慢停下,但当修复信号持续存在时,组织会不断沉积类似“疤痕”的细胞外基质,肠壁逐渐变厚、变硬,甚至形成狭窄——这一过程就是肠道纤维化。
越来越多的实验和临床线索提示,微生物失调可能通过多条路径参与肠道纤维化进程。在克罗恩病(CD)中,常可观察到微生物多样性下降、部分促炎相关菌群相对增多,以及产短链脂肪酸、支持屏障功能的菌群减少。此类改变并不意味着某一种细菌能够单独导致肠道纤维化,更可能反映了微生物、宿主免疫、屏障状态和局部组织环境之间失衡后的相互放大。
屏障受损后,脂多糖、鞭毛蛋白和细胞壁成分等微生物信号更容易接触肠壁深层细胞,并通过Toll样受体、NOD样受体等模式识别通路激活上皮细胞、成纤维细胞及免疫细胞;随后,TGF-β、TL1A/DR3、IL-33/ST2、IL-6/STAT3等信号可推动成纤维细胞活化和细胞外基质沉积。与此同时,微生物还可通过影响巨噬细胞极化、T细胞反应、氧化应激和肠系膜脂肪重塑,构建持续存在的促纤维化微环境。
尤其是黏附侵袭性大肠杆菌(AIEC)等特定菌株,因其黏附上皮、侵入细胞、形成生物膜及维持慢性刺激的能力,常在CD狭窄相关病灶中受到关注。微生物代谢物同样可能是连接菌群与肠壁重塑的重要媒介:短链脂肪酸具有维持屏障和调节免疫的潜在保护作用,而L-天冬氨酸、三甲胺及氧化应激相关信号则被视为值得进一步验证的促纤维化线索。
本文围绕克罗恩病肠道纤维化与肠道微生物组的关系,概述纤维化的病理基础及其与慢性炎症的联系,分析微生物失调、屏障损伤、免疫异常、爬行脂肪和代谢物改变在纤维化中的作用,并讨论AIEC等潜在致病菌及关键宿主信号通路。进一步评估饮食和代谢调节、功能菌干预、粪便微生物移植、抗黏附治疗及宿主信号靶向等策略的潜力与局限。肠道微生物群是理解CD纤维化的重要线索和潜在靶点,而非单一病因或成熟疗法;未来仍需高质量临床研究明确患者分型、作用机制及获益人群,以推动精准、安全的抗纤维化治疗。
什么是克罗恩病肠道纤维化?
克罗恩病中的肠道纤维化,是肠道在长期、反复炎症损伤后发生的异常修复过程:成纤维细胞和肌成纤维细胞持续被激活,产生并沉积过多胶原蛋白、纤维连接蛋白等细胞外基质,使肠壁逐渐增厚、变硬、失去弹性,并最终造成肠腔狭窄、梗阻。
关于肠道狭窄机制的原理图
编辑
doi: 10.1177/17562848221104951.
纤维化不是一次炎症,而是修复失控
肠道纤维化,可以从一个贴近生活的角度理解:皮肤擦伤后,身体会启动修复:先止血,再清理受损组织,随后长出新的组织。大多数时候,伤口会慢慢收口,修复程序也会逐步关闭。肠道的修复过程同样如此,只是它面对的环境更加复杂:肠腔里持续有食物、细菌和代谢物通过,肠壁每天都要经历伸缩和摩擦。当炎症反复出现,修复系统就可能长期处在“还没有结束”的状态,最终把本来灵活的肠壁修成了僵硬的狭窄段。
肠道纤维化的病理生理框架:超越慢性炎症
编辑
Kim JH,et al.Intest Res.2026
肠道纤维化的机制
克罗恩病相关肠道纤维化是一个复杂且动态的病理过程,涉及多种因素之间的相互作用与共同影响。深入理解这些因素及其作用机制,对于明确纤维化的发生发展,并开发更具针对性的治疗方法至关重要。
克罗恩病肠道纤维化的主要病理机制
编辑
doi: 10.3390/jcm14124060.
导致肠道纤维化的主要病理机制及因素
编辑
doi: 10.3390/jcm14124060.
(1)参与肠道纤维化的细胞
成纤维细胞、肌成纤维细胞、平滑肌细胞及巨噬细胞等共同参与纤维化。慢性炎症和生长因子刺激可促使这些细胞活化、增殖,并增加胶原等细胞外基质的生成。
活化的成纤维细胞可转化为表达α-SMA的肌成纤维细胞;狭窄部位的肌成纤维细胞更倾向于促进胶原沉积,且MMP3表达降低,不利于基质降解。平滑肌细胞增生、肥大及其与周围间充质细胞的相互作用,也会加重肠壁重塑。
(2)肠道纤维化的分子机制
IL-1、IL-4、IL-6、IL-13、IL-17和IL-33等促炎、促纤维化细胞因子,可促进成纤维细胞活化、上皮—间充质转化及胶原沉积;IL-10、IL-22等则具有一定抗纤维化作用。
TGF-β是核心调节因子,可通过Smad2/3通路上调Ⅰ型胶原和纤维连接蛋白表达。PDGF、CTGF和bFGF进一步促进间充质细胞的迁移、增殖和基质合成。
(3)细胞外基质的改变
细胞外基质过度沉积是纤维化和狭窄形成的直接基础。慢性炎症下,胶原、纤维连接蛋白等成分持续累积;虽然基质金属蛋白酶(MMPs)参与基质降解,但其与基质金属蛋白酶组织抑制剂(TIMPs)之间的失衡总体倾向于减少基质降解、维持基质稳定。组织硬度增加又可刺激细胞继续沉积基质,形成正反馈。
(4)爬行脂肪的作用
爬行脂肪是肠系膜脂肪组织包绕病变肠段的表现,其中的脂肪细胞和免疫细胞可分泌IL-6、TGF-β、TNF-α等介质,招募巨噬细胞和T细胞,并促进细胞外基质沉积。其与肠道炎症及细菌转位相互作用,持续维持局部促炎和促纤维化环境。
注:爬行脂肪(creeping fat)是克罗恩病的典型肠系膜改变,指肠系膜脂肪组织异常增生,并逐渐向病变肠段表面延伸、包裹肠壁,有时可覆盖肠道周径的50%以上。
(5)肠道微生物群与肠道纤维化
肠道菌群失调和屏障损伤可使细菌成分进入肠壁,通过TLR、NOD2和NF-κB等通路激活免疫细胞及肌成纤维细胞。AIEC可借助炎症环境持续定植,并通过IL-33/ST2等信号促进纤维化。
菌群代谢异常,尤其是产短链脂肪酸菌减少,也可能削弱屏障保护和免疫调节,从而促进纤维化进展。
谁在制造“疤痕”:成纤维细胞与肌成纤维细胞
狭窄肠段中存在不同的间充质细胞亚群,其中部分细胞表现出较强的促纤维化特征;单细胞研究还提示,某些成纤维细胞亚群与细胞外基质重塑相关。这说明纤维化并不是一群完全相同的细胞在做同一件事,而是多个细胞群体在不同位置、不同时间共同参与。
• 成纤维细胞:它们负责合成胶原蛋白、纤维连接蛋白等细胞外基质,并参与组织修复。
• 肌成纤维细胞:既制造基质,也产生收缩力,改变局部组织结构。短期活化有助于修复,但长期活化可能使肠壁增厚、变硬并收紧,促进狭窄形成。
✔ 对患者而言,这个认识有一个重要意义:未来治疗未必只是“全面抑制成纤维细胞”。更理想的方向可能是识别真正处于异常活化状态的细胞,阻断它们收到的错误信号,同时保留正常修复所需要的能力。
细胞因子是“传递信号”
肠道细胞并非独立运作,而是通过细胞因子传递信息,识别损伤、招募免疫细胞并启动修复。
• 转化生长因子β1(TGF-β1):在纤维化过程中,转化生长因子β1(TGF-β1)是重要的促纤维化信号,可促进肌成纤维细胞活化,增加胶原蛋白及其他基质成分的合成。
资料显示,Th2和Th17的免疫环境相关信号、IL-6/STAT3、TL1A/DR3及IL-33/ST2通路也可能参与促纤维化网络。各通路并非彼此孤立,可能相互放大,并在不同模型和病程阶段发挥不同作用。
✔ 注意:某条通路在实验中有效,并不意味着它是所有患者的“总开关”。关键在于明确不同患者、病程阶段和组织环境中的主导信号,并评估阻断该信号的获益与风险。
组织变硬会反过来加剧纤维化
纤维化还有一个容易被忽略的特点:它可能形成自我强化的循环。细胞外基质沉积增多后,组织会变得更硬。细胞能够感知周围环境的硬度,并通过机械敏感信号改变自己的形态、黏附和增殖状态。处在较硬基质上的成纤维细胞,可能更容易维持活化状态,继续制造更多基质。
基质变硬增强局部黏附、增殖和促纤维化
研究指出,基质刚度变化可增强局部黏附、增殖和促纤维化信号,并帮助解释为什么某些狭窄即便在炎症活动减少后仍可能持续。TGF-β/Smad信号、机械敏感通路以及肠平滑肌和肠系膜脂肪之间的联系,都可能参与这一自我强化过程。
表观遗传改变:细胞记住“曾经损伤”
狭窄部位的肌成纤维细胞还可能发生更深层的分子重塑。所谓表观遗传,可以简单理解为细胞在不改变基因顺序的情况下,改变某些基因的开关状态。经历长期炎症和机械刺激后,细胞可能更容易打开促纤维化程序,也更难回到安静状态。
Smad7减少会使纤维化更容易持续
狭窄来源的肌成纤维细胞存在增强的TGF-β信号、较高的相关转录活动以及Smad7减少等变化。Smad7通常能够对TGF-β受体下游信号起到一定的抑制作用,因此其减少可能使促纤维化反应更容易持续。
纤维化并不只是“炎症还在不在”的问题,也可能是细胞状态已经被重新编程。未来如果能够让这些细胞重新获得停止修复、清除多余基质的能力,或许比单纯压制某一个炎症指标更能解决问题。
给患者的启发:不要把复杂病程全归咎于个人生活习惯
肠道纤维化是持续损伤、异常修复、细胞因子网络和组织硬化共同作用的结果。它与炎症相连,却不等同于炎症;需要同时关注免疫控制和组织重塑。
患者很容易产生自责:是不是自己吃错了?或者运动不够、作息不好,才让病情越来越复杂?
生活方式确实会影响整体健康和疾病管理,但肠道纤维化是多因素过程,涉及遗传易感、免疫调控、屏障状态和组织反应,不能简单归结为个人“做得不对”。
更合理的做法,是把可以控制的事情做好:按医嘱治疗,关注症状变化,接受必要的影像和内镜评估,保持适合自身耐受的营养摄入,并在出现梗阻风险信号时及时就医。
上一章讲了“肠壁为何变硬”,本章进一步探讨肠道微生物组参与其中的途径。目前较清晰的框架分为三层:第一,肠壁细胞直接感知微生物信号;第二,上皮细胞与免疫细胞接力,将局部刺激放大为炎症和修复信号;第三,微生物代谢物及组织外环境的变化,使这种反应持续存在。
肠道微生物群影响肠道成纤维细胞的机制
编辑
doi: 10.3389/fmed.2022.826240.
第一条路径:成纤维细胞直接识别微生物成分
人们通常认为,只有免疫细胞能识别微生物。实际上,肠道肌成纤维细胞等间充质细胞也表达多种模式识别受体,可识别脂多糖、鞭毛蛋白等微生物相关分子模式。LPS/TLR4、鞭毛蛋白/TLR5和PG-PS/NOD2/TLR2等信号轴,可能促进成纤维细胞活化及细胞外基质(ECM)重塑。
微生物失调介导的肠道屏障破坏和纤维化途径激活
编辑
Kim JH,et al.Intest Res.2026
LPS/TLR4信号促进促纤维化细胞因子释放
肠道肌成纤维细胞中的 LPS/TLR4 信号可激活 NF-κB,促进促纤维化因子释放和细胞外基质(ECM)生成;同时抑制 Smad7、TGF-β1 诱饵受体等负调控因子,间接放大 TGF-β 信号,从而加剧纤维化。
LPS–TLR4信号通过直接和间接机制促进纤维生成
编辑
Kim JH,et al.Intest Res.2026
此外,LPS 还可通过非 TGF-β 依赖机制直接诱导人类成纤维细胞表达胶原基因,显示其自身具有促纤维化作用。
鞭毛蛋白产生菌对促纤维化刺激有重要影响
鞭毛蛋白/TLR5信号是另一条独立于TGF-β的促纤维化通路。在人肠间质细胞(HIMFs)中,鞭毛蛋白通过TLR5/MyD88/PI3K/AKT/mTOR通路诱导ECM蛋白生成,并与TGF-β1协同作用。体内研究显示,α-SMA⁺细胞缺失MyD88可显著减轻肠道纤维化,凸显该通路的重要性。
鉴于肠道微生物组持续存在,且克罗恩病(CD)中鞭毛蛋白产生菌(如大肠杆菌和沙门氏菌)相对富集,鞭毛蛋白可能是持续存在且与疾病相关的促纤维化刺激。
✔ 保护屏障对阻断纤维化非常重要
只要微生物成分越过受损屏障,接触到组织深层,就有可能成为这些细胞接收到的外部信号。因此,保护屏障和减少异常暴露,可能是阻断纤维化的重要前置环节。
第二条路径:上皮细胞受刺激后把信号传给成纤维细胞
肠上皮细胞位于肠腔和身体组织之间,是微生物信号最早接触到的界面之一。它们受到刺激后,会释放细胞因子、趋化因子和氧化应激相关信号,影响周围的免疫细胞与间充质细胞。于是,微生物不必直接作用于成纤维细胞,也可能通过上皮细胞完成“间接转接”。
直接和间接微生物组驱动的纤维化通路
编辑
Kim JH,et al.Intest Res.2026
侵袭性病原菌可诱导上皮产生促纤维化信号
某些侵袭性微生物(如Shigella flexneri strain M90T)可诱导上皮细胞产生IL-6等促纤维化相关信号;炎症因子组合也可能上调上皮细胞中的TGF-β表达,随后使肌成纤维细胞增加胶原产生。
此外,活性氧可促进细胞外基质沉积,并通过TGF-β/Smad通路推动纤维化反应。
编辑
Kim JH,et al.Intest Res.2026
若上皮损伤持续存在,这些信号可能长期增强,导致炎症反应持续及组织修复异常。因此,修复上皮屏障与控制炎症并非相互替代,而是需要协同进行。
第三条路径:巨噬细胞把短暂刺激变成长时间的修复信号
巨噬细胞既参与损伤清除,也参与组织修复,并会随微环境改变功能状态。部分状态偏向防御,另一些则偏向修复与重塑;若修复反应持续过久,可能释放过量TGF-β等信号,促进成纤维细胞产生细胞外基质。
M2巨噬细胞有时会促进肠道纤维化
M1巨噬细胞通常是促炎的,由Th1细胞因子如TNF-α和IFN-γ诱导,而M2巨噬细胞则表现出抗炎和促纤维化特性,由Th2细胞因子IL-4和IL-13促进。
M2巨噬细胞主要通过释放TGF-β来促进纤维化。此外,M2巨噬细胞可以招募Th2淋巴细胞,进一步增强纤维生成信号。一项最新研究表明,凋亡的肠上皮细胞诱导M2巨噬细胞中Mer受体酪氨酸激酶(MerTK)/细胞外信号调节激酶(ERK)通路的激活,导致TGF-β1分泌、成纤维细胞激活和细胞外基质(ECM)产生,最终促进克罗恩病中的肠道纤维化。
注:不过,M2巨噬细胞在肠道纤维化中的具体作用仍待明确,不能将“M2”简单视为单一、固定的细胞类型。
微生物组还可能通过调节T细胞和抗原呈递细胞,将局部反应扩展至更广泛的免疫网络。例如,口腔来源细菌、牙周炎症与Th17反应的联系提示,不同部位的微生物群及免疫状态可能相互影响;抗原呈递细胞产生的TL1A则可能增强T细胞活化,并进一步作用于表达DR3的成纤维细胞。
编辑
Kim JH,et al.Intest Res.2026
粘附侵袭性大肠杆菌,值得重点关注
粘附侵袭性大肠杆菌(AIEC)在克罗恩病肠道纤维化中值得重点关注,主要基于以下几点:
①与狭窄型病变密切相关:AIEC常在克罗恩病狭窄病灶中检出,黏膜阳性率约为21%~62%,提示其可能参与纤维狭窄形成,而不仅是炎症的伴随现象。
②具有黏附、侵袭和持续定植能力: AIEC可通过FimH与上皮细胞CEACAM6结合,优先定植于回肠黏膜;同时能够破坏上皮屏障并侵入黏膜,增加肠壁暴露于细菌及其组分的机会。
③可直接触发促纤维化信号: AIEC来源的LPS和鞭毛蛋白可分别激活TLR4、TLR5等模式识别受体,诱导NF-κB、PI3K/AKT/mTOR及IL-33/ST2等通路,促进成纤维细胞活化、胶原蛋白和ECM生成。其中部分作用可独立于TGF-β,说明AIEC可能通过多条机制推动纤维化。
④连接上皮、免疫与间充质反应: AIEC鞭毛蛋白可增强上皮细胞IL-33/ST2信号;同时,AIEC还能刺激CX3CR1⁺抗原呈递细胞产生TL1A,进一步激活T细胞及DR3⁺成纤维细胞,形成持续的促纤维化网络。
⑤具有明确的精准干预价值: AIEC存在菌株异质性,适合开展个体化检测和治疗。阻断FimH介导的黏附、破坏生物膜、使用噬菌体或细菌素选择性清除AIEC,可能成为针对微生物—纤维化轴的治疗策略。但目前相关证据仍以机制研究和动物实验为主,临床有效性有待进一步验证。
AIEC菌株在肠道中的持续定植会促进肠道纤维化
编辑
doi: 10.3389/fmed.2022.826240.
微生物移位:肠道屏障失守及其向肠系膜的延伸
屏障受损时,活菌或微生物成分可由肠腔进入黏膜深层,甚至抵达肠系膜脂肪组织,这一过程称为微生物转位。由此,肠系膜脂肪组织可能持续暴露于微生物信号,成为肠道炎症和纤维化反应的参与者。
肠系膜脂肪组织可识别脂多糖(LPS)、鞭毛蛋白等病原体相关分子模式(PAMP),并通过TLR、NLR等先天免疫通路持续响应,进而影响巨噬细胞状态、脂肪组织重塑及平滑肌反应,可能构成“爬行脂肪”与肠道纤维化之间的联系。
因此,肠道纤维化是肠腔、肠壁、免疫细胞、脂肪组织及微生物代谢物相互作用的结果。干预可能需要同时减少异常微生物信号转位、维护肠道屏障,并阻断不同组织间的促炎和促纤维化放大效应。
很多人提到肠道疾病时,首先想到的是肠腔和肠黏膜。但在克罗恩病中,肠道周围的肠系膜脂肪组织也可能发生明显变化。它不再只是被动包裹肠管的“填充物”,而可能参与免疫反应、脂肪代谢和组织重塑。
临床上常用“爬行脂肪”描述包绕炎症肠段、沿肠管分布的肠系膜脂肪改变。
脂肪组织也是会“说话”的器官
脂肪细胞能够释放脂肪因子、细胞因子、脂肪酸和生长因子。正常情况下,这些信号参与能量储存和组织稳态。
肠系膜脂肪驱动炎症纤维化
当肠道长期炎症、微生物成分进入肠系膜后,脂肪组织的细胞组成和分泌模式可能改变。它们释放的介质会作用于邻近肠壁,影响免疫细胞、平滑肌细胞和成纤维细胞。
研究发现,微生物对肠系膜脂肪组织中的脂肪细胞和前脂肪细胞的刺激,可能有助于爬行脂肪形成以及克罗恩病肠道纤维化发展。病变脂肪组织可出现成熟脂肪细胞减少、前体细胞增多、促炎介质增加和成纤维细胞样细胞扩增等变化。
编辑
Kim JH,et al.Intest Res.2026
✔ 提示:
因此,当患者看到影像报告或手术记录中提到肠系膜改变时,不必把它理解成与肠道完全无关的“附带现象”。它可能反映的是肠壁和周围组织正在共同应对长期炎症。当然,具体意义仍需结合影像、内镜、病理和临床表现判断,不能仅凭一个描述就推断疾病一定会如何发展。
脂肪组织可能转向成纤维细胞样状态
研究显示,脂肪细胞具有一定可塑性。在微生物刺激、炎症及TGF-β等信号作用下,成熟脂肪细胞可能去分化为前体样细胞,并进一步转化为具有肌成纤维细胞特征的细胞,直接参与细胞外基质生成。DPP4相关前体细胞和TGF-β信号可能是这一过程的重要线索。
这意味着,脂肪组织中的纤维化细胞来源可能比过去认识的更复杂,不一定仅来自传统成纤维细胞。就像原本用于储存能量的仓库,在长期炎症刺激下,部分细胞可能转而参与组织“加固”;短期有助于维持结构,长期却可能使周围组织变得狭窄、僵硬。
“爬行脂肪”可能形成肠壁外的放大回路
肠系膜脂肪组织受到微生物信号和炎症介质激活后,可能释放更多促炎因子,增强M2样巨噬细胞、Th1/Th17反应及平滑肌改变。
M2a巨噬细胞极化促进成纤维细胞激活和爬行脂肪形成
编辑
Kim JH,et al.Intest Res.2026
肠腔、肠壁与脂肪组织相互促纤维化
肠壁炎症又会进一步损伤屏障,使更多微生物成分接近肠系膜,进而形成肠腔、肠壁与脂肪组织相互促进的恶性循环。
此外,炎症肠段平滑肌细胞释放的纤维连接蛋白等信号,可能促进前脂肪细胞迁移;当组织力学环境改变、Hippo等通路失衡时,脂肪细胞也更易转化为促纤维化细胞。
注:Hippo信号通路是一条在进化上高度保守的激酶信号转导通路。
这并不意味着“脂肪越多,纤维化越严重”,也不能用单纯减重替代克罗恩病治疗。关键在于组织微环境和细胞功能,而非体重本身。临床上更重要的是识别肠系膜脂肪释放的促病信号,并在保护正常组织功能的前提下,阻断其与肠壁之间的异常联系。
如果说微生物是肠道中的“居民”,那么微生物代谢物就是它们持续发出的化学信号。不同菌群利用膳食纤维、蛋白质、胆碱、磷脂酰胆碱和L-肉碱等原料后,会产生不同物质。这些代谢物不仅能作用于肠上皮细胞,还会影响巨噬细胞、T细胞、成纤维细胞和肌成纤维细胞;当肠屏障受损时,它们还可能进入肠壁深层组织,甚至进入全身循环。
因此,判断微生物组的意义,不能只看“有哪些菌”,还要关注“这些菌正在产生什么”?相同的菌群数量,在不同饮食、炎症和宿主代谢环境下,可能产生不同的功能结果。代谢物正是连接微生物与宿主的重要中间层。
肠腔狭窄、腹胀人群摄入纤维需注意
短链脂肪酸(SCFAs)主要包括乙酸盐、丙酸盐和丁酸盐,通常由肠道细菌发酵膳食纤维产生。其中,丁酸盐是结肠上皮细胞的重要能量来源,也是目前研究最充分的保护性代谢物之一。
与丁酸生成相关的菌群包括:
粪杆菌属,尤其是普拉梭菌(Faecalibacterium prausnitzii);
罗氏菌属(Roseburia);
真杆菌属(Eubacterium);
厌氧棒菌属(Anaerostipes);
粪球菌属(Coprococcus);
罕见小球菌属(Subdoligranulum);
厌氧丁酸菌属(Anaerobutyricum);
以及部分 Romboutsia、Anaerotruncus 和 Lachnospiraceae_NK4A136 group。
在克罗恩病相关的菌群失调和纤维化表型中,上述部分产短链脂肪酸菌群可能减少,尤其是普拉梭菌和部分毛螺菌科成员。它们的减少可能意味着肠道发酵膳食纤维、维持屏障和调节免疫的能力下降。
丁酸盐可能通过多条路径发挥保护作用
(1)丁酸盐可被肠上皮细胞利用:支持上皮细胞的能量代谢和修复。它还可能促进紧密连接蛋白和黏液屏障相关功能,帮助减少肠腔内微生物成分向固有层和肠系膜转移。
(2)丁酸盐能够抑制组蛋白去乙酰化酶:改变部分炎症和免疫相关基因的表达。通过这一机制,它可能促进调节性T细胞(Treg)分化,帮助恢复Th17/Treg之间的平衡,降低持续性免疫激活。
(3)短链脂肪酸可影响巨噬细胞的功能状态:部分研究提示,丁酸和相关产物有助于诱导具有抗炎或组织修复特征的巨噬细胞亚型,并促进IL-10等调节性因子产生。普拉梭菌及其代谢物还可能抑制Th17反应,从而减少IL-17对肌成纤维细胞的刺激。
(4)短链脂肪酸可能直接或间接影响成纤维细胞:它们一方面减少上皮损伤和炎症介质释放,另一方面可能降低TGF-β、IL-6等促纤维化信号的持续刺激,从而减少胶原蛋白和其他细胞外基质的异常沉积。
并非所有人都适合增加纤维摄入来补充短链脂肪酸
需要注意的是,这些保护作用主要来自细胞、动物和部分转化研究。即使短链脂肪酸具有潜在益处,也不代表患者都适合立即大量增加粗纤维或自行服用丁酸盐补充剂。
对于已经存在肠腔狭窄、腹胀、腹痛或梗阻风险的人群,过多不易消化的膳食纤维反而可能增加不适。饮食调整应结合疾病活动度、狭窄位置、营养状态和个人耐受性进行。
L-天冬氨酸:肠道狭窄的促纤维化候选物
与短链脂肪酸不同,L-天冬氨酸可能代表一类具有促纤维化作用的代谢信号。多组学研究发现,L-天冬氨酸水平与克罗恩病肠道狭窄或纤维化程度存在相关性,其来源可能涉及Saccharimonadales等微生物类群。
L-天冬氨酸能驱动肠壁纤维化
在体外实验中,L-天冬氨酸能够刺激人肠道肌成纤维细胞,诱导促纤维化基因表达;在动物模型中,它也可能加速细胞外基质沉积和肠壁纤维化。这提示,某些氨基酸代谢变化可能不仅是炎症的伴随现象,还可能直接参与成纤维细胞的功能改变。
其可能的过程包括:
目前,抑制L-天冬氨酸的合成、转运或细胞摄取被视为潜在研究方向。但“代谢物升高”“能够影响细胞”和“针对它治疗能够改善患者狭窄”是三个不同层次的问题,现有证据尚不足以支持患者自行通过饮食或补充剂降低L-天冬氨酸。
三甲胺:可能在不同组织中影响纤维化
三甲胺(TMA)和三甲胺-N-氧化物(TMAO)体现了“微生物—肝脏—宿主”共同决定代谢物效应的过程。
TMA与TMAO影响纤维化的多重因素
TMA和TMAO在不同组织纤维化研究中被认为可能通过氧化应激、TGF-β/Smad3、NLRP3炎症小体和PERK-mTOR等路径影响纤维化;材料同时指出,克罗恩病患者的TMA和TMAO变化可能存在复杂性,不能简单以“越高越坏”概括。最终效应取决于:
这表明,代谢物水平不仅取决于菌群,还受饮食原料、微生物加工、肝脏转化及宿主清除能力共同影响。因此,未来的代谢物干预需综合考虑饮食、菌群和宿主代谢,而不能仅依赖单一益生菌或保健品。
氧化应激:不利代谢环境如何反过来改变菌群
肠道炎症不仅改变菌群组成,也会改变肠道的氧化环境。炎症细胞和肠上皮细胞可产生过量活性氧(ROS),使肠腔和黏膜局部处于更强的氧化应激状态。
炎症氧化应激驱动产丁酸菌流失
这种环境对严格厌氧的产丁酸菌并不友好。例如,罗氏菌属和臭气杆菌属(Odoribacter)可能因氧化压力增加而减少;而菌群保护功能下降后,屏障修复能力进一步减弱,形成恶性循环。
研究还提示,P2X7受体可能是连接炎症、氧化应激和菌群变化的关键节点。P2X7受体被激活后,可促进NLRP3炎症小体活化并增加ROS生成,进一步推动IL-1β等炎症信号释放。炎症和氧化应激增强后,又可能加剧产丁酸菌的流失。
这一过程可以概括为:炎症增强 → P2X7受体激活 → NLRP3炎症小体和ROS增加 → 产丁酸菌减少 → 屏障功能下降 → 微生物及其产物转位增加 → 炎症和纤维化进一步加重。
相反,抑制P2X7/NLRP3轴、增强Nrf2等抗氧化防御通路,理论上可能减轻氧化环境,为有益厌氧菌恢复创造条件。但这目前仍主要属于机制研究和早期转化方向,并不意味着患者可以自行使用相关抑制剂或抗氧化补充剂。
色氨酸代谢物:吲哚、AHR与肠屏障修复
色氨酸是另一类重要的微生物代谢底物。部分肠道细菌能够将色氨酸转化为吲哚及其衍生物,包括吲哚-3-乙酸、吲哚-3-醛等。这些物质可以作用于芳香烃受体(AHR),影响上皮屏障和黏膜免疫。
色氨酸代谢物促进肠屏障保护
拟杆菌属的脆弱拟杆菌(Bacteroides thetaiotaomicron)被认为具有利用膳食色氨酸产生吲哚类物质的能力。吲哚激活AHR后,可能进一步影响Nrf2相关抗氧化通路,并促进:
当屏障得到改善时,脂多糖、鞭毛蛋白、细菌细胞壁片段以及其他促炎代谢物就不容易进入肠壁深层,从而间接减少成纤维细胞、巨噬细胞和T细胞受到的刺激。
注:目前,这一方向的研究重点不是单纯增加色氨酸摄入,而是探索“富含色氨酸的饮食+能够稳定产生有益吲哚代谢物的菌株”是否能够形成更可靠的屏障保护效果。对于克罗恩病患者,饮食和补充剂仍应根据疾病活动、肠道狭窄和营养状况个体化调整。
从“菌名检测”走向“功能检测”
传统菌群检测通常回答的是:某个菌属增加了,另一个菌属减少了。但对于肠道纤维化而言,更关键的问题可能是:
因此,未来更有价值的检测可能不是单纯列出“有哪些菌”,而是把宏基因组、代谢组、炎症指标、影像学和内镜结果结合起来,判断微生物组的实际功能。
一份报告即使显示某些“有益菌”减少,也不能直接预测患者一定会发生狭窄;同样,某种代谢物升高也不能单独作为纤维化诊断依据。只有当代谢物变化与症状、炎症活动、影像学狭窄和组织表现相互印证时,才可能真正帮助临床决策。
关于肠道微生物组与纤维化的许多认识,来自细胞实验、动物模型、患者组织和血清标志物研究。每一类证据都像一块拼图,但它们的强度和局限不同。理解证据如何一步步建立,可以帮助我们既看到研究前景,也不被“实验室有效”误导成“临床已经成熟”。
遗传线索: NOD2揭示宿主识别细菌的机制
资料显示,NOD2变异可能影响细菌成分识别,并与Paneth细胞功能障碍相关。Paneth细胞分泌抗菌肽、维持上皮屏障;其功能异常可能改变肠道与微生物之间的距离及信号强度。Nature于2021年发表的研究进一步支持了NOD2与克罗恩病肠道纤维化之间的机制联系。
这一发现表明,疾病风险不仅取决于“有哪些菌”,还取决于宿主如何识别和处理它们。相同的微生物环境在不同遗传背景下,可能引发程度不同的反应。
抗微生物抗体:提示病程复杂,但不能单独诊断纤维化
研究发现,CBir1、OmpC和I2等抗微生物抗体可能与克罗恩病的复杂病程、狭窄或穿透表型及更高的手术风险相关,部分血清学变化甚至可能早于临床诊断出现。但需要明确的是,它们无法可靠地区分肠道纤维化与其他复杂疾病表现。
因此,这些指标应被视为风险线索,而非命运预测。检测结果异常可提示医生加强随访、进一步进行影像学评估或综合判断,但不能替代症状、内镜、影像和病理结果。患者也不应仅因一次异常检测,就认定自己必然需要手术。
细胞实验结果需谨慎外推至临床
将微生物成分加入培养的上皮细胞或成纤维细胞后,研究者可观察到NF-κB、TGF-β、ROS等信号变化。这类实验只能说明细胞能否响应某种刺激,无法确认患者体内是否存在相同浓度的刺激、刺激是否来自同一种细菌,或阻断该刺激能否带来临床获益。
研究指出,部分上皮细胞实验使用了永生化细胞,仍需通过原代细胞和体内研究进一步验证。明确实验局限,是保证科学可靠性的重要组成部分。
临床现实:炎症控制仍是基础
资料指出,肠道纤维化常导致狭窄,临床意义重大,而有效的抗纤维化疗法仍是未满足的需求。微生物组机制为超越传统免疫抑制提供了新思路,但许多靶点仍停留在细胞、动物或早期转化研究阶段。
对患者来说,这意味着不能因为微生物组研究出现新进展,就自行停用现有治疗或用未经验证的方法替代规范管理。现阶段最稳妥的策略仍是由消化科团队判断炎症活动、狭窄程度、营养状况和并发症风险;微生物组相关检测和干预,只有在明确目的、了解局限并与整体治疗计划协调时,才可能发挥更大价值。
纤维化并不只发生在克罗恩病患者肠道。它本质上是组织反复受损后,修复过程没有按时“刹车”:成纤维细胞和肌成纤维细胞持续活化,胶原等细胞外基质(ECM)过度沉积,原本柔软、有弹性的组织逐渐变厚、变硬、失去正常结构。长期进展可导致器官功能下降,甚至器官衰竭。
除肠道外,纤维化可累及几乎所有器官和组织,最常见、危害最大的包括以下几类。
肺
✔ 常见纤维化形式或相关疾病:
• 特发性肺纤维化(IPF);
• 尘肺;
• 部分间质性肺病;
• 系统性硬化症相关间质性肺病。
✔ 主要危害:
肺泡间隔增厚、肺组织变硬,气体交换受阻;出现进行性气短、干咳、活动耐量下降,严重时呼吸衰竭。
肝脏
✔ 常见纤维化形式或相关疾病:
• 慢性乙/丙型肝炎;
• 酒精相关肝病;
• 代谢功能障碍相关脂肪性肝炎(MASH)等所致肝纤维化。
✔ 主要危害:
肝脏结构被瘢痕组织重塑,进展后可形成肝硬化、门静脉高压、腹水、消化道出血、肝功能衰竭,并增加肝细胞癌风险。
心脏
✔ 常见纤维化形式或相关疾病:
• 高血压性心肌纤维化;
• 心肌梗死后瘢痕;
• 糖尿病或心肌病相关纤维化。
✔ 主要危害:
心肌变硬、舒张和收缩功能受损,导致心力衰竭;同时可干扰电信号传导,增加心律失常和猝死风险。
肾脏
✔ 常见纤维化形式或相关疾病:
• 肾小球硬化;
• 肾小管间质纤维化。
✔ 主要危害:
肾单位逐渐丢失,滤过能力下降,可出现蛋白尿、水肿、电解质紊乱和尿毒症;晚期可能需透析或肾移植。
其他
编辑
不同器官纤维化,为什么危害都很大?
不同部位表现不同,但核心危害相似:
(1)组织变硬、弹性下降
肺无法充分扩张,心脏无法舒张,肠道难以蠕动,皮肤和关节难以活动。
(2)正常结构被“瘢痕”取代
例如肝小叶、肾单位、肺泡和心肌结构被破坏后,即使炎症减轻,功能也未必能完全恢复。
(3)形成自我强化循环
纤维化组织越硬,机械张力越大,越容易进一步激活TGF-β等促纤维化信号;因此纤维化有时可在炎症相对平稳后仍继续进展。
(4)增加终末期器官衰竭风险
肺纤维化可发展为呼吸衰竭,肝纤维化可发展为肝硬化与肝衰竭,肾纤维化可发展为终末期肾病,心肌纤维化则与心力衰竭和恶性心律失常密切相关。
与肠道微生物群有什么联系?
肠道微生物群的影响并不局限于肠道。肠屏障受损、菌群失衡或微生物代谢异常时,细菌成分及代谢物可能进入门静脉或全身循环,影响远端器官的免疫、炎症和代谢环境。
✔ 注意:菌群改变通常是风险线索和潜在参与因素,而不是单一病因。肠道菌群检测可作为个体化风险评估和动态观察的补充,但是不能单独诊断某个器官是否纤维化,也不能替代影像、内镜、血液检查或病理评估。
当我们知道微生物组可能参与纤维化,下一步自然会问:能不能把它调回来?目前研究主要沿着四个方向展开:恢复有益的代谢功能,精准补充或移植微生物,针对特定病原菌及其毒力,直接阻断微生物与宿主之间的促纤维化信号。
它们都很有潜力,但距离成为稳定、普适的临床方案,仍然需要回答安全性、个体差异、持续时间和真实结局等问题。
恢复功能:纤维、益生菌与合生元
✔ 短链脂肪酸产生菌有助于减轻纤维化
研究发现,通过益生菌、膳食纤维或合生元补充短链脂肪酸产生菌群,可能帮助改善屏障和免疫环境;F. prausnitzii、Anaerotruncus和Lachnospiraceae_NK4A136等产短链脂肪酸相关类群被列为有前景的研究对象。
短链脂肪酸(SCFA)产生菌,如F. prausnitzii,在克罗恩病(CD)相关的菌群失调和纤维化表型中常显著减少;其及其代谢物可上调抗纤维化细胞因子(IL-10、IL-12),同时抑制Th17反应。
注:除了SCFAs,某些长链脂肪酸,如二十碳四烯酸,已显示出通过降低ECM基因表达和CD患者特异性类器官模型中的组织硬度而具有靶向抗纤维化效果。
这里的重点并不是寻找或追求一个“最强菌种”,而是尽可能恢复一组相互关联的肠道功能。理想状态下,肠道生态系统应具备处理膳食纤维、产生具有保护作用的代谢物、支持屏障完整性以及维持免疫耐受的能力。也就是说,关注的不只是某个菌是否增加,还包括整体菌群能否共同发挥这些功能,以及这些功能是否与患者的实际状态相匹配。
✔ 调控P2X7R轴重塑抗纤维化菌群生态
近期证据表明,P2X7受体(P2X7R)是连接菌群失调与纤维化的关键分子开关。激活P2X7R可诱导NLRP3炎症小体并增加活性氧生成,形成不利于Roseburia、Odoribacter等严格厌氧产丁酸菌生存的氧化环境;抑制或缺失P2X7R则能减轻氧化应激,恢复这些有益菌的生态位。
其中,Roseburia intestinalis可增强上皮屏障,并抑制IL-17、肿瘤生长因子M等促纤维化介质的分泌;Odoribacter splanchnicus则抑制Th17反应、促进Treg分化,其细胞外囊泡还能通过抑制NLRP3炎症小体进一步减轻黏膜损伤。因此,调控P2X7R/NLRP3轴以重塑抗纤维化微生物组,可能成为下一代治疗策略。
✔ 益生菌干预应注重个体化与安全性
不同患者在饮食耐受性、基础菌群组成和症状表现方面存在较大差异。因此,未来更可能采用分层设计,根据个体情况选择相应的饮食、益生菌或合生元策略,而不是让所有患者都使用完全相同的配方。即使某种组合在研究中显示出潜力,也不能简单推断其对每个人都具有相同效果。
在日常管理中,可以将饮食记录与症状记录结合起来,持续观察哪些食物在病情稳定期更容易耐受,哪些食物在症状加重时可能需要暂时调整。这样的记录有助于了解个人模式,但不等同于自行制定严格的长期饮食方案。
任何明显改变饮食结构,或长期使用益生菌、合生元及其他补充剂的决定,都应同时考虑肠道狭窄、营养不良和药物相互作用等问题,并与整体治疗安排保持协调。
粪菌移植:从“整体搬运”走向更精准的微生物组干预
粪便微生物移植常被探索用于恢复健康微生物,但疗效并不一致,该领域正向针对特定纤维生成通路的精确干预转变。
✔ 特定菌株精准靶向肠道抗纤维化治疗
最近的研究表明,口服给药F. prausnitzii或其细胞外囊泡通过优先诱导抗纤维化的M2b巨噬细胞极化而非促纤维化的M2a表型来缓解肠道纤维化。此外,Bacteroides thetaiotaomicron与F.prausnitzii的双重组合在恢复Th17/Treg平衡和刺激抗纤维化IL-10分泌方面显示出优于单药治疗的疗效。
B.thetaiotaomicron的治疗潜力源于其将膳食色氨酸代谢为吲哚的能力,吲哚是芳香烃受体(AHR)的配体。激活AHR-Nrf2轴通过上调紧密连接和粘蛋白基因增强上皮屏障,同时保护肠上皮细胞免受氧化应激和TNF诱导的细胞凋亡。此外,B.thetaiotaomicron衍生的代谢物抑制病原菌的生长。
未来肠道纤维化治疗应由传统粪菌移植转向精准微生物组干预。由于菌群定植受患者原有菌群、饮食、药物、炎症及免疫状态影响,且供体材料存在未知成分、安全性和标准化等问题,FMT难以实现稳定、可控的疗效。
更具前景的策略是采用经过筛选、定量和质量控制的功能组合,例如将富含色氨酸的饮食与B.thetaiotaomicron或吲哚衍生物结合,以强化肠黏膜屏障、抑制促纤维化病原体移位,并实现更具针对性的抗纤维化治疗。
针对AIEC驱动纤维生成的精准干预
✔ 通过分析患者的AIEC菌株进行个性化干预
粘附侵袭性大肠杆菌(AIEC)与克罗恩病相关的狭窄有关,患者的粘膜阳性率约在21%至62%之间。这种显著的患者间变异性和菌株异质性突显了AIEC作为克罗恩病中潜在精准医疗靶点的可能性。
在未来,针对患者特定的粪便或组织AIEC菌株进行分析,以识别促纤维化特征,可以实现个性化干预,例如阻止上皮细胞粘附、采用噬菌体疗法选择性消除特定患者的AIEC,或抑制促纤维化代谢物的合成。
✔ 精准靶向AIEC的抗纤维化策略
针对AIEC及其促纤维化作用,已有多种治疗策略正在探索。环丙沙星、利福昔明等抗生素的临床疗效有限;相比之下,短链烷基硼酸和细菌素等新型药物在临床前研究中可有效抑制AIEC生长与致病性。
噬菌体可识别细菌表面受体、注入遗传物质并裂解靶菌,因此个体化噬菌体鸡尾酒疗法有望选择性清除促纤维化AIEC。研究显示,含7种噬菌体的鸡尾酒可在体外清除多种AIEC菌株,并减轻小鼠结肠炎炎症;FimH抑制剂Sibofimloc通过阻断AIEC上皮黏附也显示出良好效果,但仍需进一步验证。
总体而言,精准微生物组干预有望控制AIEC阳性CD患者的纤维化。其临床常规应用仍需实现目标菌株的快速准确鉴定,并证实清除该菌株可改善炎症、狭窄及患者生活质量。
直接针对宿主信号:从TGF-β、TL1A到氧化应激
除了改变微生物本身,还可以阻断微生物信号进入宿主后的关键节点。研究方向包括TGF-β相关通路、TL1A/DR3、IL-33/ST2、IL-6/STAT3、NLRP3炎症小体、P2X7受体和氧化应激防御等。理论上,阻断这些通路可以减少成纤维细胞活化或改变免疫细胞状态。
✔ 精准调控抗纤维化信号平衡
研究证据提到,抑制TL1A或IL-33/ST2等信号在实验模型中可以减少纤维化,激活Nrf2等抗氧化防御也被视为潜在策略;但不同通路广泛参与免疫和组织稳态,靶向时需要平衡抗纤维化获益与感染、免疫抑制或其他副作用风险。
这也是为什么抗纤维化治疗不能只追求“越强越好”。肠道需要一定的免疫防御,也需要一定的修复能力。真正理想的治疗,是把失控的信号压回合理范围,而不是让肠壁失去所有反应能力。
未来可能是组合策略,而不是单一方案
克罗恩病纤维化的形成涉及微生物、屏障、免疫、脂肪组织、机械环境和遗传背景。只改变其中一层,可能不足以扭转已经形成的循环。未来的方案或许会根据病程阶段组合使用:在炎症活动期加强疾病控制,在屏障受损时减少异常微生物暴露,在特定菌株明确时进行选择性靶向,在组织已经变硬时针对机械和基质重塑。
但组合治疗也意味着更复杂的风险管理。每增加一种干预,就需要回答它是否真的必要、是否会与现有药物相互影响、如何监测效果、何时停止。患者真正需要的不是“越多越先进”,而是有明确目标、有证据支持、能够被监测和调整的个体化方案。
克罗恩病肠道纤维化,并不是简单的“炎症留下的疤痕”,而更像一场长期失衡的修复:反复的炎症、受损的肠道屏障、被激活的免疫细胞、不断沉积的细胞外基质,以及肠系膜脂肪和肠道微生物群的变化,共同推动肠壁逐渐增厚、变硬,最终形成狭窄。
这种复杂性可能令患者感到疲惫:症状反复,检查结果未必完全反映实际感受,治疗也难以立即解决所有问题。但复杂不等于无能为力。研究正从“炎症如何发生”进一步转向“组织为何硬化”“哪些微生物信号参与其中”以及“如何在维持正常生态的基础上进行干预”。这些更精准的问题,将推动治疗更贴近患者需求。
肠道微生物群让我们看到,纤维化的发生不只取决于“有没有炎症”,还与肠道如何识别微生物信号、屏障是否完整、哪些代谢物增加或减少密切相关。菌群失调可能通过激活成纤维细胞、放大TGF-β等促纤维化信号、影响免疫反应和“爬行脂肪”,使修复过程难以适时停止;而短链脂肪酸等有益代谢物及其产生菌,可能有助于维持屏障和免疫平衡。
未来更合理的路径,是以规范控制炎症为基础,结合症状、实验室指标、影像与内镜评估、营养管理和生活方式调整,并在合适情况下纳入肠道菌群等微生态监测信息,开展个体化、动态化的综合干预。理解并利用微生物组,不是寻找“万能答案”,而是让我们有机会更早识别风险、更精准地保护肠道,并尽可能阻止肠壁在反复损伤与修复中逐渐变硬。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
相关阅读:
真实案例 | 克罗恩病患者肠道菌群检测
肠道菌群:用于区分克罗恩病与非克罗恩回肠炎
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
肠道菌群失调与炎症性肠病的关联
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症性肠病中宿主与微生物群的相互作用
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
什么是肠道屏障,影响因素,监测评估以及如何治疗干预
主要参考文献
Kim JH, Choi YJ, Yoo JH. Gut microbiome: a key driver and therapeutic target of intestinal fibrosis in Crohn’s disease. Intest Res. 2026 Aug 10.
Rieder F, Mukherjee PK, Massey WJ, Wang Y, Fiocchi C. Fibrosis in IBD: from pathogenesis to therapeutic targets. Gut. 2024 Apr 5;73(5):854-866.
Fousekis FS, Mpakogiannis K, Mastorogianni IN, Lianos GD, Christodoulou DK, Katsanos KH. Intestinal Fibrosis in Crohn’s Disease: Pathophysiology, Diagnosis, and New Therapeutic Targets. J Clin Med. 2025 Jun 8;14(12):4060.
Rieder F, Fiocchi C, Rogler G. Mechanisms, Management, and Treatment of Fibrosis in Patients With Inflammatory Bowel Diseases. Gastroenterology. 2017 Feb;152(2):340-350.e6.
Lin X, Wang Y, Liu Z, Lin S, Tan J, He J, Hu F, Wu X, Ghosh S, Chen M, Liu F, Mao R. Intestinal strictures in Crohn’s disease: a 2021 update. Ther Adv Gastroenterol. 2022 Jun 21;15:17562848221104951.
Watanabe D, Kamada N. Contribution of the Gut Microbiota to Intestinal Fibrosis in Crohn’s Disease. Front Med (Lausanne). 2022 Feb 7;9:826240.
Kim HY, Song MK, Gho YS, Kim HH, Choi BK. Extracellular vesicles derived from the periodontal pathogen Filifactor alocis induce systemic bone loss through Toll-like receptor 2. J Extracell Vesicles. 2021 Oct;10(12):e12157.
Yoo JH, Holubar S, Rieder F. Fibrostenotic strictures in Crohn’s disease. Intest Res. 2020 Oct;18(4):379-401.
谷禾健康
记忆力下降、反应变慢、注意力不集中、认知功能减退等问题,正在受到越来越多关注。
尤其是在新冠疫情之后,脑雾、记忆力下降、疲劳和注意力减退等认知相关症状影响了更多人群,也让大脑健康不再只是老年人的话题。
大脑衰老不仅会带来记忆和反应能力下降,还会增加阿尔茨海默病、帕金森病等神经退行性疾病的发生风险。随着认知功能逐渐受损,一个人的学习能力、工作效率、生活质量,甚至独立生活能力都可能受到影响。
以往谷禾写过:大脑退行疾病的两个重要诱因:氧化应激和肠道失衡,人的脑部大约有860亿个神经元和数万亿个突触连接,由250-300亿的神经胶质细胞支持,消耗基础氧气中约20%的比例来维持ATP驱动的活动。
这种高代谢特征,也让大脑更容易产生大量活性氧,也就是ROS。同时相比其他组织,大脑的抗氧化防御系统相对较弱。一旦ROS水平长期超过抗氧化系统的清除能力,就可能出现氧化还原稳态紊乱,形成氧化应激。
氧化应激会损伤细胞结构,干扰能量代谢和神经信号传递,也是多种神经系统疾病的重要病理基础。
可以说,大脑是一个高度耗能、也高度脆弱的器官。
过去,人们更多把神经退行性疾病理解为神经系统内部的问题,而相对忽略了外周器官,尤其是肠道,对大脑功能的长期影响。现在,越来越多证据显示,肠道和大脑之间存在一条复杂的双向通讯网络,也就是微生物群-肠-脑轴。
这条通路并不是单一机制,而是通过神经、代谢、免疫和内分泌等多种方式,把肠道微生态状态与大脑功能紧密连接起来。
肠道菌群可以通过自身代谢产物或次生代谢产物,影响氧化应激、系统性炎症、能量代谢、血脑屏障、神经递质和应激反应,进而参与大脑衰老和认知功能变化。
本文将从机制到干预,系统梳理肠道菌群如何影响大脑衰老:包括微生物群-肠-脑轴的核心通路、可能加速认知衰退的风险菌、支持认知健康的有益菌,全面总结包括饮食、生活方式和精准微生态管理等干预策略,希望为关注脑健康的专业人士和大众提供科学、前沿、实用的知识框架。
如果说过去对大脑衰老的理解更多集中在中枢神经系统内部,例如神经元损伤、突触丢失、小胶质细胞活化、Aβ相关蛋白病理,那么近年的研究正在把视角进一步前移:大脑衰老并不只是脑内事件,它与肠道微生态、外周免疫、代谢信号和神经内分泌网络密切相关。
肠道微生物群与中枢神经系统之间的双向通讯网络是理解肠道菌群如何影响大脑衰老的基础。
编辑
doi.org/10.1007/978-981-99-8803-7
接下来,我们将从神经通路、代谢通路、免疫通路和内分泌通路四个层面,梳理肠道菌群如何影响血脑屏障、神经炎症、海马功能和认知表现。
神 经 通 路
迷走神经把肠道状态传给大脑
在微生物群-肠-脑轴中,迷走神经是一条非常重要的神经通路。
迷走神经如何把肠道信号传给大脑?
迷走神经是人体最长的脑神经之一,其中约80%的纤维属于传入纤维。
它可以把来自胃肠道的机械刺激、化学信号、免疫状态和代谢变化,传递到脑干孤束核,再进一步影响海马、杏仁核、下丘脑、前额叶皮层等脑区。
编辑
doi.org/10.1007/978-981-99-8803-7
这些脑区分别与记忆、情绪、压力、执行功能有关。因此,当肠道菌群失衡影响迷走神经信号时,最终可能反映为认知表现、睡眠状态、情绪稳定性和压力应答能力的变化。
肠道菌群不是直接发消息,而是先改变肠道信号环境
肠道菌群产生或调节的多种代谢物,包括:短链脂肪酸、胆汁酸、色氨酸代谢物和微量胺类物质等,首先影响的是肠道局部环境,包括肠上皮细胞、肠嗜铬细胞、肠神经系统和免疫细胞。随后,这些局部变化再通过迷走神经、内分泌信号和免疫炎症信号传递到中枢神经系统。
也就是说,肠道菌群先改变肠道内部环境,再通过迷走神经把这些变化翻译成大脑能够识别的信号。
★ 5-羟色胺
——肠道产生,但主要通过信号通路影响大脑
人体外周约90%的5-羟色胺(简写5-HT)由肠道肠嗜铬细胞合成,但肠源性5-HT通常不能大量直接穿过血脑屏障。
因此,肠道5-HT对脑功能的影响,更多是通过调节肠神经系统、迷走神经活性、免疫细胞和内分泌信号间接实现。
已有研究显示,部分共生菌能够促进肠嗜铬细胞释放5-HT,并改变肠道神经活动和胃肠动力。
肠道产生的5-羟色胺通常不能大量直接穿过血脑屏障。因此,它对脑功能的影响,并不等同于“肠道5-羟色胺直接进入大脑”。它主要通过激活肠神经系统、迷走神经传入纤维、免疫细胞和内分泌信号,间接影响脑内神经活动、情绪调节和认知过程。
★ GABA和多巴胺
——更多是间接影响神经信号
除了5-HT,肠道菌群还可能影响GABA、多巴胺等神经递质相关通路。
GABA 能帮助大脑放松。部分乳酸菌和双歧杆菌具有谷氨酸脱羧酶系统,可能参与GABA相关代谢。
比如植物乳杆菌 PS128,被认为是一种有潜力的精神益生菌,能改善情绪和运动功能。
注:目前仍然缺乏脑脊液检测等严格的临床数据来证明这种直接的转化关系。
多巴胺,是大脑的快乐与动力分子,一些肠道细菌也可以影响酪氨酸、苯丙氨酸等芳香族氨基酸代谢,并产生酪胺、苯乙胺等微量胺类物质。
这些代谢物可以作用于微量胺相关受体,例如TAAR家族受体,从而影响肠道神经、免疫和内分泌信号。
不过,这里也需要避免一个常见误解:不能简单说“酪胺进入大脑后,会被多巴胺β-羟化酶转化为多巴胺”。事实上,多巴胺β-羟化酶的经典作用,是将多巴胺转化为去甲肾上腺素。
肠道菌群影响多巴胺系统,并不是直接往大脑里输送多巴胺,而是通过间接方式,比如:
衰老后,这条肠-脑神经通路可能变迟钝
在衰老过程中,肠道菌群组成、肠屏障功能和色氨酸代谢都会发生变化。这些变化可能影响5-羟色胺合成相关酶,例如色氨酸羟化酶1(TPH1)的表达或活性,并进一步改变肠—脑信号传递。
与此同时,衰老相关的肠道菌群失调,还可能削弱迷走传入神经元功能。也就是说,肠道里的信号还在发生,但大脑对这些信号的接收和响应能力可能下降。
而海马与学习、记忆和空间认知密切相关。因此,当迷走神经介导的肠—脑通讯减弱时,海马神经元活动和记忆编码过程也可能受到影响。
相关动物研究显示,恢复较年轻的肠道菌群组成,或改善肠道代谢环境,可能有助于增强迷走神经介导的肠—脑通讯,并改善部分与衰老相关的认知功能下降。
最新 Nature 研究:神经通路在认知老化中具有因果作用
近期,Cox等人在《Nature》发表的研究进一步证实:
衰老相关的肠道菌群失调,会通过抑制迷走传入神经元功能,削弱大脑接收肠道内感受信号的能力。
这种信号传递受阻,最终会导致海马功能下降和记忆编码受损。
这一发现的重要意义在于,它不仅说明肠道菌群与大脑衰老有关,更进一步证明了:神经通路在认知老化过程中具有直接的因果作用。
▼
编辑
代 谢 通 路
肠道菌群释放的化学信号,如何影响大脑衰老?
如果说迷走神经像是信息高速路,那么微生物代谢产物就像是肠道菌群释放出来的化学信号。
这些信号可作用于肠道、免疫系统、血管内皮细胞,甚至影响中枢神经系统的炎症和屏障功能。其中研究最深入的代谢物,就是短链脂肪酸。
★ 短链脂肪酸:连接饮食、菌群和大脑
短链脂肪酸,简称SCFAs,是膳食纤维经肠道菌群发酵后产生的主要代谢物,主要包括:乙酸、丙酸、丁酸。
编辑
doi.org/10.1007/978-981-99-8803-7
它们不仅作用于肠上皮细胞、免疫细胞和肠神经系统,也可以通过血液循环、迷走神经和免疫调节等途径,影响中枢神经系统功能。
短链脂肪酸在体内存在明显的浓度梯度
一般来说,肠腔和粪便中的浓度最高,门静脉中降低,进入外周血后进一步下降,而进入脑组织或脑脊液中的浓度通常更低。
编辑
因此,短链脂肪酸影响大脑,更可能是先作用于肠道和外周免疫系统,再通过炎症调节、迷走神经信号、血脑屏障和胶质细胞功能,间接影响脑功能。
★ GPR受体:短链脂肪酸发挥作用的关键开关
短链脂肪酸可以通过多种受体发挥作用,其中较重要的包括:GPR43、GPR41、GPR109A。
GPR43(FFAR2)主要对乙酸和丙酸敏感,可以调节免疫细胞活动、炎症因子释放和代谢状态。
在神经炎症模型中,SCFAs可抑制NF-κB相关促炎信号,降低IL-1β、TNF-α、IL-6等炎症因子表达,并影响小胶质细胞成熟、活化状态和吞噬功能。
GPR41(FFAR3)更多参与肠神经系统、外周神经节和肠内分泌细胞相关信号。丙酸等短链脂肪酸可能通过这一通路影响神经元兴奋性、肠激素释放和自主神经活动。
GPR109A(HCA2)是丁酸和烟酸相关的受体之一。
丁酸除了可以作用于受体,还能作为HDAC抑制剂,通过表观遗传机制调节炎症、神经发生、髓鞘形成和突触可塑性相关基因表达。因此,丁酸对脑功能的影响是受体信号、免疫调节、表观遗传和代谢调控共同作用的结果。
★ 血脑屏障:守住大脑稳定环境的关键屏障
代谢通路影响大脑衰老,一个非常关键的环节是血脑屏障。
血脑屏障由脑微血管内皮细胞、紧密连接蛋白、基底膜、周细胞和星形胶质细胞终足共同构成。它就像大脑的安全门,负责控制哪些物质可以进入脑内,哪些物质应该被阻挡在外。
当血脑屏障完整时,大脑可以维持相对稳定的内部环境;但如果血脑屏障变得薄弱,外周炎症因子、微生物相关分子和其他有害信号就更容易影响中枢神经系统,进而推动神经炎症和认知功能下降。
肠道菌群可以影响血脑屏障的成熟和通透性
研究显示,无菌小鼠的血脑屏障通透性增加,紧密连接蛋白表达下降;而定植正常菌群或补充丁酸钠后,血脑屏障完整性可以得到改善,并伴随occludin、claudin-5等紧密连接相关蛋白上调。
丁酸盐对血脑屏障的保护作用,主要体现在几个方面:
在部分衰老或神经炎症动物模型中,丁酸盐补充可降低血脑屏障通透性和脑内炎症负荷。不过,这些效果仍会受到实验模型、剂量、干预时间和宿主状态影响。
★ 色氨酸:连接菌群、情绪和大脑炎症的通路
色氨酸主要有三条代谢方向:
当衰老、慢性炎症、肠道菌群失调时,色氨酸代谢方向可能发生偏移。也就是说,同样是色氨酸,最终走向不同代谢分支,对大脑产生的影响可能完全不同。
编辑
吲哚丙酸:具有神经保护潜力的菌群代谢物
在色氨酸代谢产物中,吲哚丙酸(IPA)是较受关注的一种菌群来源代谢物。
部分细菌,例如Clostridium sporogenes,可以通过与fldAIBC基因簇相关的芳香族氨基酸代谢通路参与吲哚丙酸生成。
吲哚丙酸具有抗氧化、抗炎、屏障保护作用,可能通过清除自由基、减轻线粒体损伤、调节AhR/PXR相关信号,以及维持肠屏障和血脑屏障功能发挥保护作用。
在阿尔茨海默病和认知障碍相关研究中,较低的吲哚丙酸水平可能与认知下降、代谢异常或神经退行性改变有关。
注:这类发现仍需要更多队列研究和干预研究验证。
IPA受到关注,主要有几个原因:
★ TMAO:放大炎症与认知风险的信号
TMAO,也就是三甲胺-N-氧化物,就是近年来受到关注的一类潜在风险代谢物。
TMAO的形成通常需要两个步骤:
TMAO最早主要在心血管疾病和肾脏疾病中受到关注,近年来也被用于研究肠道菌群与认知障碍、脑血管损伤和阿尔茨海默病之间的关系。
人体研究显示,轻度认知障碍或阿尔茨海默病患者脑脊液中的TMAO水平可能高于认知正常个体,并且较高TMAO水平可能与阿尔茨海默病相关病理、神经退行性标志物或认知表现存在相关性。
注:这些结果主要是观察性关联,不能直接证明TMAO就是认知下降的因果驱动因素。TMAO水平还会受到饮食、肾功能、年龄、心血管代谢状态、药物和检测方法等多种因素影响。
★ 细菌结构成分:也会影响炎症
除了小分子代谢物,细菌来源的结构成分也可能参与肠-脑轴调节,例如脂多糖LPS、肽聚糖PGN、脂壁酸LTA,以及细菌淀粉样蛋白。
这些分子本身不一定需要大量进入脑实质,也可以通过外周免疫激活、血脑屏障损伤、脑血管内皮反应、迷走神经信号和脑室周围器官等途径,影响中枢炎症状态。
LPS是研究最充分的细菌结构成分之一
当肠屏障受损、外周LPS水平升高时,它可以激活免疫系统,诱导IL-1β、TNF-α、IL-6等炎症因子释放;也可以作用于脑血管内皮细胞,破坏紧密连接结构。
若血脑屏障通透性本身已经升高,这些炎症信号就更容易影响中枢神经系统,进一步推动神经炎症和认知功能下降。
细菌淀粉样蛋白curli/CsgA与神经退行性疾病的关系近年来也受到关注。部分研究认为,curli可能通过交叉播种或免疫预激活机制,促进宿主淀粉样蛋白病理,例如Aβ或α-syn聚集。
注:不过,目前关于细菌淀粉样蛋白在人体脑内直接转运和共定位的证据仍然有限。
机制补充:LPS如何通过TLR4/NF-κB通路放大炎症反应?
LPS引发炎症反应的核心通路之一,是TLR4/NF-κB信号轴。简单来说,LPS会先被免疫识别分子捕获,并激活TLR4受体,随后启动MyD88依赖性炎症通路,最终促使NF-κB进入细胞核,诱导IL-1β、TNF-α、IL-6等炎症因子表达。
编辑
这一过程在细胞模型中启动很快,近端信号可在数分钟至十余分钟内发生,炎症基因表达则通常在数小时内明显升高。因此,如果LPS刺激持续存在,就可能不断放大外周炎症,并通过血脑屏障、脑血管内皮细胞和小胶质细胞等途径,推动中枢神经炎症。
血脑屏障渗漏:炎症信号如何更容易影响大脑
衰老、慢性炎症、肠道菌群失调和代谢异常,都可能削弱血脑屏障完整性。
其核心变化包括:紧密连接蛋白下降、内皮细胞炎症增强、周细胞覆盖减少、基底膜重塑、星形胶质细胞终足功能异常,以及转胞吞作用增加。
在衰老动物中,海马、皮层和脑室周围区域可出现不同程度的血脑屏障通透性升高。常见分子改变包括occludin、claudin-5、ZO-1等紧密连接蛋白表达下降,内皮细胞黏附分子增加,MMP-2/MMP-9活性增强,以及小胶质细胞和星形胶质细胞炎症反应增强。
编辑
doi.org/10.1007/978-981-99-8803-7
LPS和其他细菌来源分子可通过TLR4激活脑血管内皮细胞炎症通路,诱导NF-κB、MLCK和RhoA/ROCK等信号,导致细胞骨架收缩、紧密连接重排,最终增加血脑屏障通透性。
其中,MLCK激活后可促进肌球蛋白轻链磷酸化,引起细胞骨架收缩和紧密连接蛋白重新分布。同时,炎症信号还可促进occludin、claudin-5、ZO-1的内吞或降解,使屏障结构进一步变弱。
▸▸
总体来看,代谢通路是肠道菌群影响大脑的一套化学语言。短链脂肪酸和吲哚丙酸等代谢物,可能通过抗炎、抗氧化和保护血脑屏障支持脑健康;而TMAO、LPS及部分细菌结构成分,则可能在菌群失衡和慢性炎症背景下,增加神经炎症和认知下降风险。
免 疫 & 内 分 泌 通 路
炎症和压力轴如何共同影响大脑?
很多时候,肠道菌群失调会先影响肠屏障和外周炎症状态,而炎症信号又会进一步影响血脑屏障、胶质细胞以及HPA轴,也就是下丘脑—垂体—肾上腺轴。
因此,理解免疫与内分泌通路,要看到它们如何共同参与“肠道菌群—系统性炎症—神经炎症—压力反应—认知功能下降”这一连续过程。
肠屏障受损:系统性炎症的起点
肠道本身就是人体最大的免疫相关器官之一。正常情况下,肠道菌群与肠黏膜免疫系统之间维持着一种动态平衡:既要允许共生菌存在,又要防止有害微生物和炎症信号过度扩散。
但在衰老、慢性应激、感染、膳食结构改变或菌群失调等情况下,这种平衡可能被打破。此时,肠上皮屏障功能下降,紧密连接蛋白减少,黏液层变薄,抗菌肽分泌降低,肠道就可能进入通常所说的肠漏状态。
编辑
doi.org/10.1007/978-981-99-8803-7
一旦肠屏障变得不够严密,LPS、肽聚糖、细菌DNA、鞭毛蛋白等微生物相关分子就更容易进入肠道固有层和循环系统,激活单核细胞、巨噬细胞、树突状细胞和中性粒细胞。
随后,TNF-α、IL-1β、IL-6、IL-17、IFN-γ、CCL2、CXCL10等炎症因子释放增加,形成持续的低度系统性炎症。
这种炎症并不一定非常剧烈,却可能长期存在。对大脑来说,长期低度炎症比短期强烈炎症更隐蔽,也更容易在衰老过程中逐渐累积影响。
外周炎症如何传到大脑?
外周炎症影响大脑,并不一定意味着炎症因子必须大量直接进入脑实质。外周炎症可以通过多条路径把信号传递给中枢神经系统。
编辑
doi.org/10.1007/978-981-99-8803-7
因此,外周炎症与神经炎症之间,长期系统性炎症会让大脑处于更容易被激活的状态,降低神经元对代谢压力、氧化应激和炎症刺激的耐受性,进而影响突触修剪、神经递质平衡和认知功能。
小胶质细胞:从巡逻者变成高敏状态
在中枢神经系统中,小胶质细胞是最重要的固有免疫细胞之一。
在年轻健康状态下,小胶质细胞主要处于稳态监视状态,像大脑的巡逻者,负责识别病原信号、清除细胞碎片、参与突触修剪,并与神经元、星形胶质细胞和血管细胞共同维持脑内稳态。
这类稳态小胶质细胞通常表达P2RY12、TMEM119、CX3CR1等标志物。
编辑
但随着年龄增长,小胶质细胞会逐渐发生变化。它们可能出现促炎因子表达升高、吞噬功能异常、脂质代谢紊乱、补体通路激活,以及抗原呈递相关基因增强等特征。如果同时存在肠道菌群失调和系统性炎症,小胶质细胞就更容易进入一种预激活或疾病相关状态。
预激活,可理解为:小胶质细胞还没有完全进入强烈炎症反应,但已经变得更敏感。一旦再次遇到LPS、IL-1β、TNF-α、Aβ、损伤相关分子或氧化应激信号,就可能产生更强烈的炎症反应。
此时,IL-1β、TNF-α、IL-6、C1q、C3、iNOS等分子可能升高,进而影响突触功能和神经网络稳定性。
编辑
过去常用M1/M2模型描述小胶质细胞状态,认为M1偏促炎,M2偏抗炎和修复。但近年来单细胞测序研究显示,小胶质细胞远比这种二分法复杂。
在不同疾病和衰老背景下,小胶质细胞可能呈现疾病相关型、干扰素响应型、增殖型、吞噬型和衰老相关状态等多种亚群。
总的来说,衰老和菌群失调会让小胶质细胞从稳态监视状态,逐渐偏向促炎、吞噬异常、补体激活和疾病相关转录状态。
星形胶质细胞:保护反应也可能变成损伤因素
星形胶质细胞是大脑中非常重要的支持细胞。它们参与维持离子稳态、清除谷氨酸、支持血脑屏障、调节能量代谢和维持突触功能。
在健康状态下,星形胶质细胞更多是在帮助大脑维持稳定环境。但在神经退行性疾病、长期慢性炎症或血脑屏障受损的背景下,星形胶质细胞会从维持稳定的状态,转变为更加活跃的反应性状态。
可以把它理解为:当大脑受到炎症或损伤刺激后,星形胶质细胞会被激活,开始参与防御、修复和炎症调节。
编辑
这种反应性星形胶质细胞通常会出现一些分子标志物升高,例如:GFAP、Vimentin、C3、S100B、CXCL10、SERPINA3和LCN2。
同时,它们的形态也会发生变化,比如细胞体变大、突起重新排列,并分泌更多炎症因子、趋化因子或补体蛋白。
在肠道菌群失调和全身炎症背景下,来自外周的LPS、TNF-α、IL-1α、C1q和IL-1β等信号,都可能进一步激活星形胶质细胞。
短期来看,这种激活有一定保护意义,可以帮助隔离损伤、限制炎症扩散。
但如果激活长期持续,就可能从保护反应转变为损伤因素。长期反应性星形胶质细胞会释放更多炎症介质、趋化因子和补体蛋白,进而促进突触损伤、血脑屏障功能下降,并与认知功能受损有关。
因此,GFAP、S100B、CXCL10等指标,可以作为观察星形胶质细胞反应性和神经炎症程度的辅助参考。
HPA轴:菌群也会影响压力反应
HPA轴是人体应对压力的重要系统。简单来说,当身体感受到压力时,下丘脑会释放相关信号,促使垂体释放ACTH,最终刺激肾上腺分泌糖皮质激素。
编辑
经典无菌动物研究显示,无菌小鼠在急性应激后会表现出更强的ACTH和皮质酮反应。这提示,正常肠道菌群可能参与HPA轴发育和应激敏感性的设定。
早期定植某些共生菌,例如Bifidobacterium infantis,可以部分逆转无菌小鼠夸大的HPA轴应激反应。这说明,特定菌群可能在一定程度上帮助调节压力轴的敏感性。
压力轴失衡:为什么慢性压力会影响记忆?
当慢性应激持续存在时,HPA轴会长期处于激活状态,导致糖皮质激素持续升高。过量糖皮质激素可以通过糖皮质激素受体影响海马、杏仁核和前额叶皮层功能。
在海马中,长期高糖皮质激素可能抑制BDNF表达,削弱神经发生和突触可塑性,并增加神经元对谷氨酸兴奋性毒性、氧化应激和炎症损伤的敏感性。
这对认知功能尤其重要。因为海马不仅参与学习和记忆,还参与HPA轴的负反馈调节。
于是,可能形成一个恶性循环:
慢性应激 → HPA轴过度激活 → 海马功能下降 → 负反馈减弱 → 应激反应进一步放大。
编辑
菌群如何调节HPA轴?
肠道菌群可以通过多种方式调节HPA轴敏感性。
也就是说,肠道菌群对HPA轴的影响是神经、免疫、代谢、内分泌信号共同参与的结果。
随着肠道菌群-肠-脑轴研究的深入,越来越多证据显示,特定菌群变化可能参与认知老化、神经炎症、睡眠障碍和神经退行性疾病进展。
需要强调的是,不同菌种的证据强度并不相同。有些已经在动物模型中获得较强的因果验证,有些主要来自人群相关性研究,还有一些机制仍停留在体外实验或推测阶段。
1、Parabacteroides goldsteinii
动物模型中证据较强的促认知衰退候选菌
在年龄相关认知下降研究中,Parabacteroides goldsteinii 是近年来受到高度关注的菌种之一。
Cox 等人在 2026 年发表于《Nature》的研究中,通过多组学筛选、菌群移植、单菌定殖和靶向干预等方法,提示该菌可能参与小鼠年龄相关记忆下降过程。
研究显示,随着小鼠年龄增长,P. goldsteinii 的丰度升高,并与认知表现下降相关。
更重要的是,在功能验证中,该菌及其相关代谢产物能够削弱肠-脑信号,影响外周免疫状态,并最终损害学习和记忆功能。
目前较明确的机制,集中在中链脂肪酸产生上。
P. goldsteinii 可以产生己酸、庚酸、辛酸等中链脂肪酸。这些代谢物可能通过影响外周髓系细胞和肠道传入神经信号,进一步影响脑功能。
相比之下,胆汁酸代谢、黏液层降解和色氨酸代谢是否构成该菌促认知衰退的主要机制,目前仍需更多直接证据支持。
编辑
P. goldsteinii 可以被视为“小鼠年龄相关认知下降中具有较强因果证据的候选风险菌”。但还不能直接等同于人类认知衰退的核心病因。
2、 Enterobacteriaceae
内毒素和细菌淀粉样蛋白相关的炎症风险
肠杆菌科细菌,包括 Escherichia coli 、 Klebsiella pneumoniae 等,是肠道炎症和系统性低度炎症研究中常见的风险菌群。
它们的一个共同特点是含有脂多糖,也就是 LPS。
LPS 是一种典型的内毒素,可以通过TLR4/NF-κB等通路诱导促炎因子释放,增加肠屏障和血脑屏障通透性,并促进小胶质细胞活化。这一过程可能参与神经炎症、突触功能损害和认知下降。
编辑
其中,部分 E. coli 菌株还能产生curli菌毛淀粉样蛋白。Curli的主要结构蛋白CsgA具有淀粉样特征,在实验模型中可能促进宿主淀粉样蛋白聚集,并增强神经炎症反应。
也就是说,E. coli 的潜在风险不只来自LPS诱导炎症,也可能与细菌淀粉样蛋白影响Aβ或α-syn相关病理有关。
Klebsiella pneumoniae 在部分炎症性疾病、代谢异常和神经退行性疾病患者中也可见富集。
它的潜在风险主要来自LPS、荚膜多糖和促炎免疫激活。
若要进一步声称其特定代谢物可直接穿过血脑屏障并促进 α-syn 磷酸化,则需要明确的原始研究支持。
3、Veillonella、Citrobacter
可能通过睡眠和炎症影响认知
睡眠质量下降,是认知衰退的重要风险因素。因为睡眠不仅关系到精神状态,也参与记忆巩固、突触可塑性维持,以及大脑代谢废物清除。
在一些临床研究中,Veillonella 和 Citrobacter 与睡眠障碍和潜在认知损害有关。
例如,在卒中后睡眠障碍患者(PSSD)的粪便中,这两类细菌被观察到显著富集,并且其丰度与匹兹堡睡眠质量指数评分呈正相关。
▾
Veillonella是革兰氏阴性厌氧球菌,主要通过发酵乳酸产生丙酸和乙酸。
在睡眠障碍背景下,如果Veillonella过度生长,可能通过影响GABA能传递、促进神经炎症或改变肠—脑轴信号,间接影响睡眠质量。而睡眠紊乱本身,又会进一步影响海马突触可塑性、记忆巩固和执行功能。
▾
Citrobacter属于肠杆菌科,其富集常提示肠道生态失调、肠屏障功能障碍和炎症状态。该属细菌产生的内毒素可能触发系统性炎症,进而影响脑功能。
这两种细菌通过干扰睡眠质量和昼夜节律调节,形成”菌群失调-睡眠障碍-认知下降“的恶性循环。
4、脱硫弧菌属 Desulfovibrio
帕金森和硫化氢代谢相关的风险菌
脱硫弧菌属(Desulfovibrio属)是典型的硫酸盐还原菌,可以产生硫化氢,也就是H₂S。
已有研究报道,脱硫弧菌属在帕金森病患者肠道中可能升高,并且部分菌株可在模型系统中促进α-突触核蛋白聚集。这提示它可能参与帕金森病相关的肠-脑轴病理过程。
编辑
潜在机制主要包括几个方面。
不过,H₂S并不是单纯的有害分子。在生理浓度下,它也是一种重要的气体信号分子,参与血管舒张、线粒体调节和神经信号转导。在特定病理背景下,脱硫弧菌属可能通过增加硫化氢、LPS和炎症负荷,加重神经退行性病理风险。
编辑
5、Prevotella copri
高度依赖饮食背景的双向菌
Prevotella copri 不能简单归类为“有害菌”或“有益菌”。它的功能很大程度上取决于饮食结构、宿主代谢状态和菌株差异。
这个例子也提醒我们:
判断一种菌是风险还是保护,不能脱离饮食结构、菌株差异和宿主状态。同一种菌,在不同生态背景下,可能产生完全不同的健康效应。
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
风险菌如何共同推动认知衰退?
总体来看,可能加速认知衰退的菌群并非通过单一路径发挥作用,而是通过多个相互连接的机制节点共同影响脑功能。
代谢节点
部分菌群可增加 LPS、H₂S、中链脂肪酸、TMAO 等促炎或应激相关代谢物;
同时减少短链脂肪酸、吲哚丙酸等具有屏障保护和神经保护潜力的代谢物。
屏障节点
菌群失衡可能削弱肠道黏液层和紧密连接结构,增加肠道通透性,使 LPS 和其他微生物相关分子更容易进入循环。
系统性炎症进一步影响血脑屏障,使外周炎症信号更容易传递至中枢神经系统。
免疫节点
LPS、细菌淀粉样蛋白和异常代谢物可激活 TLR4/NF-κB、NLRP3 炎症小体等通路,促使 TNF-α、IL-1β、IL-6 等促炎因子升高,并诱导小胶质细胞活化。
神经信号节点
菌群变化可能影响 5-HT、GABA、多巴胺等神经递质相关通路,也可能通过迷走神经、肠神经系统和内分泌信号改变脑内网络活动。
蛋白病理节点
部分细菌产物,如 LPS、curli 淀粉样蛋白或硫化氢相关应激信号,可能促进 Aβ、α-syn 或 tau 相关病理过程,但不同蛋白病理对应的证据强度并不一致,需要分别讨论。
这些节点之间存在正反馈关系:菌群失衡可诱导炎症,炎症进一步破坏屏障和改变肠道生态,屏障损伤又放大微生物产物进入循环的机会,最终形成:
菌群失衡—屏障破坏—系统性炎症—神经炎症—认知下降
编辑
因此,针对认知衰退的菌群干预不应只盯着某个坏菌,而应同时考虑饮食结构、炎症状态、屏障功能、代谢物、宿主本身是否存在神经退行性病理背景。
与促炎或促衰老菌群相对应,肠道中也存在一批可能支持认知健康的有益菌。这些菌群可通过产生短链脂肪酸、调节色氨酸代谢、降低系统性炎症、维护肠道屏障和影响肠—脑轴神经信号,对脑功能产生保护作用。
需要注意的是,认知保护作用往往具有明显的菌株特异性和宿主背景依赖性。
因此,下述菌种应按照证据强度分层理解:部分已有小样本人群试验支持,部分主要来自动物实验,还有一些仍属于机制推测或观察性关联。
1、双 歧 杆 菌 属
认知和压力调节研究中证据较多的益生菌
双歧杆菌属是认知健康研究中较受关注的一类有益菌。它们的潜在作用包括改善肠道屏障、降低低度炎症、调节色氨酸代谢,以及影响肠-脑轴神经信号。
其中,Bifidobacterium longum 1714 是研究较多的精神益生菌菌株之一。已有随机、双盲、安慰剂对照研究显示,该菌株可能影响健康成人的压力反应、脑电活动和记忆相关表现。
研究提示,补充 B. longum 1714 后,受试者在急性压力任务中的生理和心理反应有所减弱,部分记忆任务表现改善,并伴随脑活动模式变化。
从机制上看,B. longum 1714 可能通过调节压力轴、肠-脑神经信号和神经递质相关通路,对认知和情绪状态产生影响。
在轻度认知障碍人群中,Bifidobacterium breveMCC1274/A1 比 B. breve M-16V 有更直接的证据。
已有研究提示,B. breve MCC1274/A1 补充可能改善部分认知测验表现,并可能减缓脑萎缩进展。
不过,这类结果目前仍需要更大样本、更长随访和独立重复研究来确认。
总体而言,双歧杆菌属可以被看作认知健康干预中较有潜力的一类益生菌,但实际效果仍要看具体菌株、受试者基线菌群状态,以及是否存在认知障碍、炎症或代谢异常等背景。
2、乳 酸 杆 菌 属
通过神经递质、炎症和屏障功能影响脑健康
乳酸杆菌属包含多个被研究较多的益生菌菌株。鼠李糖乳杆菌Lacticaseibacillus rhamnosus GG(LGG) 是研究最充分的益生菌之一。
动物研究显示,LGG 可在炎症、应激或代谢异常相关模型中改善认知表现,并与海马 BDNF/TrkB 信号、肠屏障改善和系统性炎症下降有关。
在人群研究中,LGG 也被观察到可能与中老年人认知表现改善相关,但具体效果受人群基础状态、干预时间和联合饮食因素影响。
从机制上看,LGG 可能通过改善肠屏障、减少外周炎症、调节 GABA 受体表达和影响迷走神经信号发挥作用。经典动物研究曾显示,某些乳酸杆菌对 GABA 受体表达和行为表型的影响依赖迷走神经完整性。
Lactiplantibacillus plantarum PS128是另一个受到关注的精神益生菌菌株。
动物研究显示,PS128 可在阿尔茨海默病模型中改善认知功能,并可能通过调节丙酸水平、GSK3β 活性和神经炎症发挥作用。
该菌株也被用于抑郁、焦虑、睡眠和神经发育相关研究,但目前关于其在人类轻度认知障碍中显著提高脑脊液 GABA 或直接改善执行功能的证据仍需进一步核实。
乳杆菌属Lactobacillus——维持肠道和阴道健康不可忽缺的角色
3、Akkermansia muciniphila
以屏障和代谢改善为核心的下一代益生菌
Akkermansia muciniphila 是下一代益生菌研究中的代表菌种。它能利用肠道黏液作为营养来源,并与黏液层更新、肠屏障完整性和代谢健康密切相关。
编辑
其潜在有益机制主要包括三方面。
人体研究方面,已有试验显示,A. muciniphila,尤其是巴氏灭活形式,在超重、肥胖或胰岛素抵抗人群中具有良好的安全性,并可能改善部分代谢指标和炎症相关指标。
在动物模型中,A. muciniphila 已被报道可改善睡眠剥夺、肝病相关脑功能异常或阿尔茨海默病模型中的认知损害,并与海马炎症降低、BDNF/5-HT 信号改善或 Aβ 病理减轻相关。
不过,关于 A. muciniphila 直接改善老年人认知、提高 BDNF 或改善处理速度的临床证据,目前仍不充分。
双面明星菌:Akkermansia muciniphila——从肠道微生态到情景治疗的探索
肠道重要菌属——Akkermansia Muciniphila,它如何保护肠道健康
4、产 丁 酸 菌
Faecalibacterium 与 Roseburia 的屏障和抗炎作用
产丁酸菌是认知健康相关菌群中最值得关注的一类菌。丁酸不仅是结肠上皮细胞的重要能量来源,还具有组蛋白去乙酰化酶抑制、抗炎、促进紧密连接和调节小胶质细胞功能等作用。
▾
Faecalibacterium prausnitzii是人体肠道中重要的丁酸产生菌,也是健康成人肠道内较丰富的厌氧菌之一。它主要通过丁酰辅酶A:乙酸辅酶A转移酶等通路产生丁酸,并具有较强的抗炎潜力。
在阿尔茨海默病和认知障碍相关研究中,Faecalibacterium 等产丁酸菌减少常被认为是菌群失衡的重要特征。
丁酸可能通过多条路径支持认知健康:
肠道核心菌属——普拉梭菌(Faecalibacterium Prausnitzii),预防炎症的下一代益生菌
▾
Roseburia intestinalis 同样是重要的产丁酸菌。Roseburia属丰度降低常见于炎症性肠病、代谢异常和部分神经退行性疾病相关菌群失衡状态。其潜在保护作用主要来自丁酸产生、肠屏障维护和炎症调节。
关于 Roseburia 是否通过共轭亚油酸、胆汁酸或吲哚丙酸直接发挥神经保护作用。
Faecalibacterium 和 Roseburia 共同维持肠道厌氧生态、丁酸供给、屏障稳定和低炎症状态。这些基础环境对于延缓脑老化和维持认知功能可能具有重要意义。
5、其 他 菌
与认知保护相关的候选菌
▾
Clostridium sporogenes是色氨酸代谢研究中的重要菌种,可通过相关代谢通路产生吲哚丙酸。吲哚丙酸是一种具有抗氧化和屏障保护作用的微生物来源代谢物,也被认为可能抑制 Aβ 聚集和神经炎症。
动物研究显示,通过 C. sporogenes 与膳食底物联合提高吲哚丙酸水平,可能改善阿尔茨海默病模型中的认知表现。不过,人类临床证据仍有限。
▾
Lachnospiraceae 中包含多种产短链脂肪酸菌。部分成员可能参与膳食多酚、坚果成分和复杂碳水化合物代谢,并与较好的炎症状态和代谢健康相关。
若某些队列研究显示 Lachnospiraceae UCG-004 与坚果摄入和认知表现相关,是一个观察性发现,不能直接推断为因果保护菌。
▾
Flavonifractor plautii 可参与黄酮类化合物代谢,但其健康意义具有情境依赖性。它可能参与多酚转化,提高部分代谢物的生物利用度;但在不同疾病状态下,其丰度变化和功能解释并不一致。
有益菌如何共同支持认知健康?
认知保护相关菌群可能通过多个互补层面共同发挥作用。
编辑
——代谢层面
有益菌群可产生丁酸、丙酸、乙酸等短链脂肪酸,激活 GPR41、GPR43、GPR109A 等受体,并通过表观遗传机制调节炎症和神经营养相关基因表达。
——在屏障层面
双歧杆菌、乳酸杆菌、Akkermansia 和产丁酸菌均可能增强肠道紧密连接、促进黏液层稳定、减少 LPS 易位,并间接降低血脑屏障受到系统性炎症冲击的风险。
——在免疫层面
这些菌群和代谢物可能促进 Treg 分化、增加 IL-10 等抗炎信号,抑制 NF-κB 和 NLRP3 炎症小体过度激活,并调节小胶质细胞和星形胶质细胞反应状态。
——在神经信号层面
部分菌株可能影响 GABA、5-HT、多巴胺和色氨酸代谢相关通路,也可能通过迷走神经和肠神经系统改变脑内应激反应和情绪—认知网络活动。
——在结构和功能层面
有益菌群的长期影响可能表现为海马炎症减轻、BDNF 等神经营养因子上调、突触可塑性改善和记忆巩固能力增强。
不过,这些结构层面的证据目前更多来自动物实验,人类中仍需更多影像学、脑脊液标志物和长期认知随访研究支持。
编辑
总体来看,维持认知健康的菌群依赖一个稳定、多样、低炎症、富含产短链脂肪酸和色氨酸有益代谢能力的肠道生态系统。益生菌干预若要真正影响认知健康,通常也需要与高纤维饮食、多酚摄入、规律运动、睡眠管理和代谢风险控制共同发挥作用。
除了直接靶向肠道微生物本身,通过调节菌群下游的免疫、代谢和神经通路来干预认知衰老,也是一个重要方向。
这类策略的优势在于,它们不完全依赖于复杂且高度个体化的菌群组成,而是瞄准更接近病理效应的分子和通路,例如 GPR84、IL-1β、短链脂肪酸、胆汁酸受体和迷走神经信号。
不过,这些策略的证据强度并不相同。
因此,在讨论这些策略时,应区分机制证据、动物实验结果、临床可用疗法。
GPR84 抑制:阻断菌群代谢物引发的炎症信号
GPR84 抑制是连接菌群代谢物与免疫炎症反应的一个新兴干预方向。
GPR84 是一种主要在髓系免疫细胞中表达的 G 蛋白偶联受体,可被中链脂肪酸激活。这就让 GPR84 成为一个重要接口:
Cox 等人在 2026 年的研究中发现,在小鼠模型中,Parabacteroides goldsteinii 可以产生中链脂肪酸,并通过激活髓系细胞上的 GPR84 信号,引发外周炎症。
这种炎症反应进一步削弱迷走神经介导的肠—脑信号传递,最终影响学习和记忆功能。
更重要的是,研究显示,使用小分子 GPR84 拮抗剂后,可以减轻 P. goldsteinii 或中链脂肪酸诱导的记忆损害,并抑制相关髓系炎症反应。
编辑
这一发现的意义在于,它把 GPR84 从一个机制节点推进到了潜在药物靶点的位置。
相比直接清除某一种细菌,靶向 GPR84 的理论优势是:即使不同人的菌群组成不一样,只要最终都汇聚到“中链脂肪酸—GPR84—髓系炎症”这条通路,就有可能通过阻断下游炎症效应来发挥作用。
不过,目前 GPR84 抑制用于认知老化仍处于早期转化阶段。现有 GPR84 拮抗剂主要围绕炎症性肠病、纤维化、慢性炎症疾病开发。
未来还需要进一步验证它在老年人、轻度认知障碍或神经退行性疾病中的疗效和安全性。同时,也要评估长期抑制 GPR84 是否会影响正常免疫防御和组织修复。
IL-1β 通路阻断:能否恢复被炎症削弱的肠—脑信号?
IL-1β 是连接外周炎症与神经功能改变的重要促炎细胞因子。它不仅参与系统性炎症和神经炎症,也可能通过作用于外周感觉神经元,改变肠-脑轴信号传递。
Cox 等人的机制研究提示,在小鼠中,P. goldsteinii 和中链脂肪酸诱导的髓系炎症可以增加 IL-1β 信号。随后,IL-1β 作用于表达 PHOX2B 的迷走感觉神经元,抑制其正常传入功能,从而削弱肠道向大脑传递的保护性内感受信号。
换句话说,炎症并不只是让身体处于炎症状态,它还可能直接干扰肠道向大脑传递信息的神经通路。
动物实验显示,阻断 IL-1β 相关信号可以部分逆转这一过程,恢复迷走神经功能,并改善认知表现。
目前,临床上已经有多种 IL-1 通路药物。
例如,Anakinra 是 IL-1 受体拮抗剂,可以同时阻断 IL-1α 和 IL-1β 信号;
canakinumab 是靶向 IL-1β 的单克隆抗体;
rilonacept 则是可以结合 IL-1 的融合蛋白。
这些药物主要用于自身炎症性疾病、部分风湿免疫疾病和复发性心包炎等场景。
CANTOS 研究显示,canakinumab 可以降低既往心肌梗死且炎症水平升高患者的心血管事件风险,支持了靶向炎症可以改善慢性疾病结局这一思路。
但需要注意的是,CANTOS 不能直接证明 IL-1β 阻断能够改善认知功能。IL-1β 抑制剂是否能用于认知老化或阿尔茨海默病,还需要专门设计的临床试验验证。
此外,IL-1β 并不是单纯有害的信号。它也参与宿主防御、感染控制和组织修复。长期或全身性阻断 IL-1 通路,可能增加感染风险。
因此,未来如果将 IL-1β 阻断用于认知老化,更可能适合特定人群,例如存在明显外周炎症、肠屏障损伤或 IL-1β 活化特征的亚型患者,而不是广泛用于所有老年人。
短链脂肪酸补充:与其直接补充,不如促进自身产生
在几类短链脂肪酸中,丁酸最受认知健康研究关注。
动物实验显示,丁酸钠可以通过抑制组蛋白去乙酰化酶,也就是 HDAC,增加 BDNF 等神经营养因子的表达,促进突触可塑性,并减轻小胶质细胞过度活化和神经炎症。
这些作用使丁酸成为连接“肠道菌群—代谢物—脑功能”的重要分子。
乙酸和丙酸也可通过 GPR41、GPR43 等受体调节免疫反应、能量代谢和肠道屏障功能。
但需要注意的是,短链脂肪酸并不是越多越好,也不能把乙酸、丙酸和丁酸简单看成完全相同的保护分子。
尤其是丙酸,在不同模型中可能呈现不同效应,具有明显的剂量和背景依赖性。
编辑
直接补充短链脂肪酸也面临一些现实问题。
因此,相比直接大量补充短链脂肪酸,更现实的策略可能是:
也就是说,短链脂肪酸干预的关键,不是简单补多少,而是如何让身体在合适的位置、合适的时间,产生合适水平的代谢信号。
编辑
胆汁酸代谢:一个新兴但还不成熟的方向
胆汁酸不仅参与脂肪消化吸收,也是重要的信号分子。
肠道菌群可通过胆盐水解、脱羟基化等反应改变胆汁酸谱,而不同胆汁酸又可通过 FXR、TGR5 等受体影响糖脂代谢、炎症反应和屏障功能。
在脑健康研究中,TGR5 尤其受到关注。TGR5 在小胶质细胞和星形胶质细胞等细胞中均有表达。
动物和细胞实验提示,激活 TGR5 可能抑制神经炎症、调节小胶质细胞活化状态,并在某些模型中改善认知表现。
FXR 主要在肝脏和肠道发挥代谢调节作用,但也可能通过改善外周代谢、炎症状态和胆汁酸稳态间接影响脑功能。
奥贝胆酸是 FXR 激动剂,已获批用于原发性胆汁性胆管炎。它在代谢性肝病中的研究提示,胆汁酸受体调节可影响全身代谢和炎症状态。但奥贝胆酸也存在瘙痒、血脂变化等安全性和耐受性问题,因此不能简单外推到认知老化干预。
目前,胆汁酸受体调节剂在神经退行性疾病和认知老化中的应用仍处于早期阶段。更稳妥的方向可能包括:通过饮食、益生元、胆汁酸代谢菌群调节和选择性 TGR5/FXR 调节剂,改善胆汁酸谱和慢性炎症状态。未来需要更多人体研究来确认其认知获益和长期安全性。
神经通路辅助干预:恢复肠—脑轴信号传递
迷走神经是最值得关注的神经通路。它连接肠道和脑干,并进一步影响海马、下丘脑和边缘系统等与记忆、情绪和应激反应相关的脑区。
在衰老和菌群失调状态下,肠道炎症增加、屏障功能下降以及异常微生物代谢物升高,可能削弱迷走神经传入信号,使大脑对肠道内感受信息的响应下降,进而影响海马神经活动和记忆功能。
因此,恢复迷走神经功能被认为是潜在的辅助干预方向。传统迷走神经刺激和经皮耳迷走神经刺激等方式,已在情绪、炎症和认知相关研究中受到关注,可能通过增强副交感神经活性、降低炎症反应和调节胆碱能信号影响脑功能。
不过,目前这类方法仍属于探索性干预,尚不能作为认知衰老的标准治疗。
此外,肠道菌群还可能通过影响 5-羟色胺、GABA、多巴胺和胆碱能系统参与脑功能调节。但这些作用多是间接发生的,通常依赖前体代谢、肠内分泌细胞、免疫炎症状态、迷走神经活动和屏障功能,而不是肠道神经递质直接进入大脑。
总体来看,神经通路干预的价值在于为菌群代谢、外周炎症和脑功能变化提供一个可调节的连接点。
高膳食纤维饮食:菌群健康的基础
如果要从一个最基础的饮食策略开始,那一定是增加膳食纤维。膳食纤维是肠道菌群的重要能量来源。充足的膳食纤维摄入,可以帮助维持菌群多样性和代谢活性,并促进产短链脂肪酸菌生长。
一般建议每日摄入约25–30克膳食纤维,来源可以包括:全谷物、豆类、蔬菜、水果、坚果和种子。
不同类型的纤维,会被不同菌群利用。例如:
燕麦、香蕉、洋葱、大蒜、芦笋等食物富含低聚果糖和菊粉,是双歧杆菌和乳酸杆菌喜欢利用的底物。
编辑
全谷物中的β-葡聚糖可以促进产丁酸细菌生长。
豆类中的抗性淀粉经过肠道菌群发酵后,也可以产生较多短链脂肪酸。
一些干预研究显示,增加膳食纤维摄入数周后,肠道菌群组成就可能发生明显变化,产短链脂肪酸细菌丰度增加,系统性炎症标志物下降,认知测试表现也可能出现改善。
从长期来看,坚持高纤维饮食的老年人,认知衰退速度可能更慢。
但需要注意的是,增加纤维要循序渐进。突然大量增加豆类、全谷物或菊粉类食物,可能引起腹胀、排气增多或肠胃不适。可以逐步增加,比如先把部分精米白面换成全谷物,再增加豆类、蔬菜和坚果摄入,让肠道菌群有适应过程。
地中海饮食:证据较充分的饮食模式
在认知健康相关饮食模式中,地中海饮食的证据相对最充分。
多项大型前瞻性队列研究显示,坚持地中海饮食模式的人群,认知衰退速度更慢,痴呆风险降低30%-50%。
地中海饮食的核心并不复杂,主要包括:
编辑
这种饮食模式富含膳食纤维、多酚、不饱和脂肪酸和抗氧化成分。
从肠道菌群角度看,地中海饮食可以增加一些与短链脂肪酸产生和抗炎作用相关的有益菌,例如 Roseburia、Faecalibacterium 等,并提高粪便和循环中的短链脂肪酸水平,从而减轻系统性炎症。多酚类化合物,是地中海饮食发挥作用的重要成分之一。
橄榄油中的橄榄苦苷、浆果中的花青素、姜黄中的姜黄素、葡萄中的白藜芦醇等,都具有抗氧化和抗炎潜力。
坚果:小份量也可能带来认知保护
坚果是饮食干预中比较容易执行的一类食物,也有较多流行病学和机制研究支持。
Ni et al.(2025)在747名社区老年人中进行的前瞻性队列研究提供了高质量证据,研究显示,每周食用3–7份坚果的老年人,在长期随访中整体认知功能下降速度更慢。
与不食用坚果的人相比,每周食用3份及以上坚果者,认知衰退风险明显降低。
这种认知益处可能与肠道菌群变化有关。
研究中,坚果消费组Lachnospiraceae UCG-004、Roseburia 和 Flavonifractor等菌群富集,整体微生物多样性更高,粪便短链脂肪酸水平也更高。
降解多酚黄酮的肠道重要菌——Flavonifractor,能促进痛风、抑郁也能改善便秘肥胖
机制研究提示,坚果中的多酚和不饱和脂肪酸共同作用,塑造了有益于大脑健康的肠道微环境。坚果中的精氨酸还可以转化为一氧化氮,改善脑血流。维生素E和硒等抗氧化成分则直接保护神经元免受氧化损伤。
推荐每日食用一小把坚果(约25-30克),种类多样化更佳:核桃富含ω-3脂肪酸,杏仁和腰果富含多酚,开心果富含叶黄素,花生富含白藜芦醇,各有侧重。
需要注意的是,坚果能量密度较高,最好选择原味、少盐、少糖、不过度油炸的类型。如果已经有肥胖、脂代谢异常或肾脏疾病等问题,摄入量应结合个人情况调整。
生酮饮食:有潜力,但争议也很明显
生酮饮食的证据相对复杂,存在明显的争议。该饮食通过极低碳水化合物、高脂肪摄入诱导酮症,使大脑主要依靠酮体供能。
在癫痫治疗中,生酮饮食已有近百年的应用历史。
从菌群角度看,生酮饮食显著改变肠道菌群组成,增加Bacteroides丰度,减少Firmicutes。这种菌群变化与免疫反应调节相关,可能部分解释生酮饮食的抗癫痫作用。
在认知领域,小型临床试验显示生酮饮食可以轻度改善轻度认知障碍和早期阿尔茨海默病患者的认知功能。酮体可能为受损的神经元提供替代能源,同时减少氧化应激和炎症。
但生酮饮食的高脂肪特性也可能加剧肠道菌群失调,长期使用的安全性尚未得到充分验证。可能的风险包括营养不均衡、血脂异常、肾结石风险增加等。对于老年人,还需要考虑吞咽困难和消化功能下降等问题。
目前来看,生酮饮食可能适用于特定人群的短期干预,但作为长期的认知保护策略仍需更多研究支持。个性化的生酮方案,如周期性生酮或改良生酮,可能平衡收益与风险。
注:如果要执行需要在专业指导下进行,而不是自行长期严格执行。
其他饮食模式与认知健康
▾
MIND饮食:可以理解为DASH饮食(停止高血压饮食法)与地中海饮食的结合,专门为大脑健康设计,已被证明可以降低阿尔茨海默病风险。
DASH饮食原本用于帮助控制高血压,而MIND饮食则进一步强调与认知保护相关的食物,例如绿叶蔬菜、浆果、坚果、全谷物、豆类、鱼类和橄榄油。它的优势在于执行逻辑清楚,既关注心血管代谢健康,也强调大脑友好的植物性食物和抗氧化成分。
▾
间歇性禁食作为近年来热门的饮食模式,在动物实验中显示出显著的认知改善作用。
隔日禁食、限时进食等模式可以调节肠道菌群组成,增加菌群节律性,促进短链脂肪酸产生。
注:如果存在低血糖风险、营养不良、消瘦、胃肠疾病、糖尿病用药或进食障碍史,就不宜自行尝试严格禁食。
更温和的方式,可能是避免夜间过晚进食,保持相对规律的进餐时间,而不是追求极端断食。
▾
发酵食品也是值得关注的一类食物。酸奶、泡菜、纳豆、味噌等传统发酵食品,是天然微生物和发酵代谢产物的来源。发酵食品在人类饮食历史中占有重要地位,它们不仅延长了食物保存时间,也可能提高营养价值和生物活性成分。
定期摄入发酵食品,可能有助于增加肠道菌群多样性,补充部分有益微生物,并与更好的免疫调节状态有关。
不过,发酵食品也要注意选择。优先选择低盐、低糖、少添加的产品。尤其是泡菜、咸菜、味噌等高盐发酵食品,不能因为发酵就不限制摄入。
总的来说,饮食是调节肠道菌群和支持认知健康最基础、最安全、也最容易长期坚持的方式。高纤维饮食、地中海饮食、坚果摄入、MIND饮食和适量发酵食品,都是相对更值得优先考虑的方向。需要长期建立一个高纤维、多植物、低炎症、低加工、可持续的饮食模式。
生活方式是影响肠道菌群和大脑健康的另一个重要维度。运动、睡眠和压力管理不仅直接影响大脑功能,也通过肠道菌群发挥作用。
运动:菌群重塑与认知增强
有氧运动可以显著改变肠道菌群组成,增加菌群多样性,提高产短链脂肪酸细菌的丰度。无论是耐力运动还是力量训练,都对肠道菌群产生积极影响。
运动促进肠道蠕动,改变肠道环境的物理和化学特性,为不同菌群创造适宜的生存条件。运动还通过增加血流和调节免疫反应间接影响菌群。这些变化共同促进了菌群向更健康的方向发展。
动物实验显示,运动可以增加Lachnospiraceae、Ruminococcaceae、Bacteroidetes的丰度,这些变化与认知功能改善相关。
在人体研究中,长期坚持运动的人群菌群多样性更高,产丁酸菌丰度显著增加。
推荐每周至少150分钟中等强度有氧运动,配合2-3次力量训练。运动方式应多样化,包括快走、跑步、游泳、骑行等。即使是轻度运动,如每日散步30分钟,也能对菌群产生积极影响。
睡眠:菌群节律与认知巩固
睡眠与肠道菌群之间存在双向调节关系。睡眠质量影响菌群组成和代谢活性,而菌群代谢产物反过来调节睡眠质量和昼夜节律。
睡眠剥夺导致菌群多样性下降,促炎细菌增加,产短链脂肪酸细菌减少。这些变化可能通过炎症途径影响认知功能。反过来,菌群失调产生的代谢信号也可能干扰睡眠调节,形成恶性循环。
肠道菌群具有自身的昼夜节律,这种节律与宿主的睡眠-觉醒周期同步。菌群节律的破坏可能影响褪黑素等睡眠调节激素的合成和释放,进而影响睡眠质量和认知功能。
改善睡眠质量的策略包括:
睡眠质量的改善不仅直接有益于认知功能,也通过菌群途径发挥保护作用。
压力:打破脑-肠恶性循环
慢性压力是肠道菌群和大脑健康的重要威胁。压力通过HPA轴释放皮质醇,改变肠道通透性和菌群组成,而菌群失调反过来加剧压力反应和焦虑症状。
压力-菌群失调-炎症-认知损害
压力导致的菌群特征包括:菌群多样性降低,Lactobacillus和Bifidobacterium等有益菌减少,促炎细菌增加。这些变化增强了肠道的炎症反应,削弱了屏障功能。
编辑
正念冥想、瑜伽、深呼吸训练、渐进性肌肉放松等压力管理技术可以有效降低压力水平,改善菌群状态。这些技术通过调节自主神经系统和HPA轴活动,减轻压力对肠道和大脑的负面影响。
社会支持也是压力管理的重要组成部分。良好的人际关系和社会联系可以缓冲压力的影响,保护菌群多样性和认知功能。孤独和社会隔离则会加剧压力反应,对菌群和大脑产生不利影响。
每个人的肠道菌群并不一样。有些人本身产短链脂肪酸菌较少,可能对高纤维饮食反应更明显;有些人促炎菌群较多,可能需要先降低炎症;还有些人菌群整体状态不错,可能只需要调整生活方式,不一定需要复杂干预。
这也是精准微生态医学出现的原因。核心是根据个体菌群特征、遗传背景、代谢状态、炎症水平和生活方式,制定更适合个人的干预策略。
基线菌群分层:先看属于哪一类
精准干预的第一步,是了解一个人的基线菌群。
所谓基线菌群,就是在干预开始前,个体肠道菌群原本的组成和功能状态。
这一步非常重要。比如说,基线菌群中产短链脂肪酸细菌丰度较低的个体,可能从高膳食纤维饮食中获得最大益处。而Parabacteroides丰度较高的个体,可能更适合噬菌体靶向治疗、GPR84抑制剂,或者其他针对下游炎症通路的方式。
编辑
当然,这些方法目前很多还处于研究阶段,并不是常规临床方案。
基线菌群的炎症潜能也是重要考量因素。如果一个人的菌群整体偏促炎,肠屏障受损明显,LPS等炎症相关信号较高,可能需要优先控制炎症、改善屏障功能,再考虑菌群重建。而如果菌群状态相对稳定,炎症水平不高,可能通过饮食、运动、睡眠和压力管理,就能获得较好的改善。
未来,随着机器学习和微生物组数据积累增加,研究者可能会把人群分成不同菌群亚型,并为不同亚型匹配更可能有效的干预方案。这种思路已经在肿瘤免疫治疗、代谢疾病等领域显示出价值,在认知健康领域也值得期待。
多组学整合的精准诊断
单看菌群组成,往往不足以指导精准干预。因为知道有哪些菌,并不一定等于知道这些菌正在做什么。因此,未来更有价值的方向,是把菌群和多组学数据结合起来。
例如,宏基因组测序可以告诉我们,菌群具备哪些功能潜能:它们可能合成哪些代谢物,具有哪些酶活性,参与哪些信号通路。
代谢组学则可以进一步反映菌群实际产生了什么,以及宿主身体如何响应这些代谢变化。
除此之外,还可以结合血液炎症标志物、神经递质相关指标、激素水平、认知测试结果、脑影像数据和遗传风险评分。
这些信息放在一起,可以更完整地判别一个人的肠-脑轴状态。
例如,一个人可能菌群多样性不算差,但炎症标志物偏高、TMAO水平较高、睡眠差、认知测试表现下降。另一个人可能菌群多样性较低,但炎症不明显,主要问题是膳食纤维摄入不足。
这两类人显然不应该采用完全相同的干预方案。
因此,精准微生态医学未来的方向,是建立一个多维度模型。不过,多组学整合也不是一件简单的事。它需要生物信息学分析、机器学习算法和足够大的数据库支持。随着测序成本降低和分析工具成熟,未来5–10年,多组学整合诊断有望逐步进入更多临床和健康管理场景。
动态监测与适应性调整
肠道菌群不是固定不变的。它会受到饮食、睡眠、压力、药物、感染、运动和年龄变化的影响。因此,单一时间点的检测,很难代表一个人的长期菌群状态。
这也是为什么精准微生态医学强调动态监测。通过定期采样和连续评估,可以观察菌群是否真的对干预产生反应,也可以及时调整方案。
比如,一个人开始补充益生菌后,4周过去了,菌群组成和相关代谢物并没有明显变化。这时就可能需要重新评估:是不是剂量不合适?是否缺少膳食纤维作为底物?是否存在长期睡眠不足或压力过大,抵消了干预效果?
如果只做一次检测,就很难发现这些问题。肠道菌群检测是非侵入性的,操作相对方便,受检者可以在家完成粪便采样,再寄回实验室进行分析。这样是适合后续做阶段性复测,观察菌群变化趋势。
未来,随着居家检测和可穿戴设备发展,动态监测可能会变得更容易,可以帮助人们在家中完成部分监测,降低检测成本和负担。
可穿戴设备还可以记录睡眠、心率变异性、活动量和压力相关指标,与菌群和代谢数据结合后,形成更完整的健康画像。
闭环干预
基于实时监测数据的闭环干预系统是未来的发展方向。该系统可以自动分析监测数据,预测认知变化趋势,推荐个性化的饮食、运动和补充方案,形成”监测-分析-干预-再监测“的闭环管理。
未来,人工智能和机器学习可能会参与这类闭环系统,自动分析监测数据,预测认知风险变化趋势,并给出更个体化的干预建议。当然,这仍然是未来方向,目前还不能替代专业医疗判断。
精准干预更适合用于例如认知下降风险较高、已有轻度认知障碍、存在明显炎症或代谢异常、肠道症状较多,或者普通生活方式调整效果不明显的人。它的意义是减少盲目干预。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Chen, Z., Bao, W., Su, J., Wu, X., Tan, Y., & Yang, X. (2026). Research on gut microbiota and metabolic characteristics in patients with sleep disorders after ischemic stroke. Metabolic Brain Disease, 41, 114.
Cox, T. D., Devason, A. S., de Araujo, A., et al. (2026). Intestinal interoceptive dysfunction drives age-associated cognitive decline. Nature, 652, 442-450.
Ma, X., Liu, J., Jiang, L., et al. (2025). Dynamic changes in the gut microbiota play a critical role in age-associated cognitive dysfunction via SCFAs and LPS synthesis metabolic pathways during brain aging. International Journal of Biological Macromolecules, 304, 140945.
Surajit Pathak, Antara Banerjee, et al.(2024). Gut Microbiome and Brain Ageing,Brain Aging, April.
Ni, J., et al. (2025). Nut consumption, gut microbiota and cognitive function in older adults at high cardiovascular risk. Age and Ageing, afaf208.
Shen, H., Wang, S. Y., Zhao, Y. Y., Zhou, J. L., Zhao, J., & Zhu, W. K. (2026). Brain-gut-microbiota axis: a review on the bidirectional regulatory mechanisms between gut microbiota and brain and their disease interactions. Frontiers in Microbiology, 17, 1768891.
谷禾健康
产前抑郁
在围产期健康管理中,产前抑郁(antenatal depression, AND)正在受到越来越多关注。相比产后抑郁,产前抑郁过去长期处于相对被低估的位置,但它的发生率并不低。
既往荟萃分析显示,无论以抑郁症状还是临床诊断作为标准,产前抑郁的全球患病率均接近20%。
从临床结局来看,产前抑郁已被证明与多种不良母婴结局相关,包括流产风险增加、早产、低出生体重等。
近几年,研究视角开始进一步延伸到儿童早期发育。越来越多研究关注母亲孕期抑郁症状对子代神经发育的影响,例如婴儿认知、语言、运动、问题解决能力和社会行为等发育维度。
但目前相关结果并不完全一致。一个重要原因可能是不同研究关注的抑郁暴露时间窗口不同。过去不少研究集中在孕晚期,而对孕早期、孕中期,或整个孕期持续性抑郁症状的影响关注不足。
但胎儿脑发育贯穿整个孕期。只看孕晚期,可能会低估早期情绪风险对子代发育的影响。
更关键的是,产前抑郁究竟如何影响子代神经发育,目前仍缺乏清晰机制。过去的解释更多集中在 HPA 轴、皮质醇、炎症反应、胎盘功能和母体代谢状态等方面。而近年来,肠道菌群逐渐成为一个新的机制切入点。
已有研究显示,抑郁和焦虑状态可改变肠道菌群组成;孕期焦虑、抑郁症状也与菌群多样性下降及特定菌群丰度变化有关。但这些研究多为横断面或小样本研究,较少追踪整个孕期菌群动态,也难以回答菌群变化是否真正参与了子代神经发育异常。
这里就出现了一个很关键的问题:
产前抑郁是否会通过改变母体肠道菌群,影响胎儿脑发育和出生后的神经认知表现?
近期,来自上海复旦大学妇产科医院和上海交通大学的研究团队发表在《Gut Microbes》的一篇研究,正是从这个问题切入。
研究人员结合多中心前瞻性孕妇队列、嵌套病例对照菌群分析、无菌小鼠粪菌移植实验以及丁酸补充实验,系统验证了孕期抑郁症状与婴儿神经发育受损之间的关系。
产前抑郁与婴儿早期神经发育受损相关,主要表现为婴儿问题解决和社交能力的下降,而且孕早、中、晚期的抑郁都会导致这一问题。机制上可能是通过母体肠道菌群失衡,尤其是产丁酸菌减少,导致肠屏障受损、炎症增强及胎儿脑代谢异常,从而影响神经发育。对母亲和婴儿的菌群检测显示,母婴之间肠道菌群传递较少。在小鼠实验中,粪菌移植实验表明,仅母体抑郁相关肠道菌群即可导致后代学习记忆能力下降。而丁酸补充可以改善炎症、代谢异常及后代认知表现。
对于围产期健康管理而言,这意味着孕期情绪风险背后,可能存在值得更早关注的微生态信号。
这项研究的设计比较完整,先在人群中确认关联,再通过菌群分析寻找机制线索,最后用动物实验验证因果可能。
◆ 人群队列:追踪孕期抑郁与婴儿发育
研究首先纳入 2053 名孕妇,在孕早期、孕中期和孕晚期分别使用 EPDS 量表评估产前抑郁症状,并在婴儿 3、6、12 月龄时随访神经发育表现。
随访重点包括:
注:EPDS量表是目前全球公认且广泛使用的围产期抑郁筛查工具。
◆ 菌群分析:寻找可能的机制线索
随后,研究者从队列中开展嵌套病例–对照分析,匹配出 135 名产前抑郁风险孕妇和 135 名对照孕妇,并对 504 份孕期母体粪便样本进行 16S rRNA 测序,追踪孕早、中、晚期肠道菌群变化。
在菌群分析上,研究除了关注哪些菌升高或降低,进一步将相关菌群归纳为共丰度模块,并结合功能预测,观察这些菌群变化可能对应哪些代谢通路异常。
同时,研究还收集了 290 份婴儿粪便样本,用于判断产前抑郁是否会影响婴儿出生后的菌群建立,以及母婴菌群传递是否参与神经发育异常。
◆ 动物实验:验证菌群是否具有因果作用
在人群研究之外,研究者进一步使用无菌小鼠进行粪菌移植(FMT):将产前抑郁风险女性和健康女性的菌群分别移植给无菌孕鼠,观察:
◆ 干预验证:丁酸是否是关键线索
最后,研究加入丁酸补充实验,用来验证产丁酸菌减少是否可能是关键干预点。
编辑
这样的设计超越了单纯的相关性分析,进一步挖掘了菌群是否参与其中及相关机制,以及是否存在可干预的代谢节点。
【 队列研究 】
在2053名女性的队列研究中,326名(15.9%)至少有一次EPDS ≥10 在妊娠期间(AND高危组),1634人(79.6%)没有(对照组)。
【 婴儿随访 】
对1岁以下的婴儿进行神经发育评估。AND高危组婴儿在3个月和6个月时的问题解决任务得分较低(P = 0.039,0.040)。
编辑
◐ 母亲孕期抑郁越明显,婴儿问题解决能力越弱
尤其是在 3 月龄时,EPDS 评分较高的母亲,其婴儿在问题解决能力和社交能力方面得分更低。
研究者还使用重复测量 GEE 模型进行分析,结果同样显示:无论是在孕早期、孕中期还是孕晚期,母亲 EPDS 评分越高,婴儿的问题解决能力越差。
◑ 嵌套病例–对照研究,再次验证
与对照组相比,存在产前抑郁症状的母亲,其婴儿在 3 月龄时问题解决能力更低,在 6 月龄时社交能力也更弱。
编辑
从这部分结果看,产前抑郁症状与婴儿早期神经发育表现下降存在关联,尤其集中在问题解决能力和社交能力等维度。
更重要的是,这种关联并不只出现在孕晚期。孕早期、孕中期和孕晚期 EPDS 评分升高,都可能与婴儿后续问题解决能力下降有关。也正因为如此,研究下一步需要回答:这种影响是否只是情绪状态本身带来的结果,还是与孕期母体肠道菌群变化有关?
在人群队列中,研究已经看到产前抑郁症状与婴儿早期神经发育表现下降有关。接下来,研究者进一步想了解:这种关联背后,母体肠道菌群是否发生了可识别的变化?
先区分“抑郁阶段”和“非抑郁阶段”
经过质量控制,504份来自不同孕期的母体粪便样本可供分析,覆盖孕早期、孕中期和孕晚期。
这里研究者并没有简单把孕妇分成“抑郁组”和“非抑郁组”,而是根据采样当时的 EPDS 评分,把样本进一步分为三类(下图d)。
编辑
这个分组很重要,可以帮助判断,菌群变化到底只出现在EPDS升高的阶段,还是在产前抑郁风险人群中具有一定持续性。
校正孕期阶段后,菌群差异仍然存在
孕期本身会影响肠道菌群。孕早期、孕中期和孕晚期,母体激素、免疫和代谢状态都在变化,菌群结构也会随之调整。
因此,研究人员采用PERMANOVA 分析评估了宿主因素在孕期对母体肠道菌群的影响。
结果显示,妊娠期是最显著的影响因素,其次为 产前抑郁症状。
编辑
具体来看,孕早期与孕中期之间的菌群差异显著(P < 0.05),孕早期与孕晚期之间的菌群差异更显著(P < 0.001),但孕中期与孕晚期之间差异不显著。
这说明,研究产前抑郁相关菌群变化时,必须先排除孕期自然变化的影响。
在校正妊娠阶段后,PERMANOVA 分析显示,AND-D 组与对照组之间(FDR P = 0.019),以及 AND-N 组与对照组之间(FDR P = 0.010)均存在显著差异。
编辑
分孕期来看:
也就是说,产前抑郁相关菌群改变并不只局限在某一次 EPDS≥10的抑郁阶段,即使某一阶段评分暂时低于阈值(也就是说非抑郁状态),菌群结构仍然可能与健康对照不同。
这提示一个关键信号:产前抑郁相关的母体菌群变化,更像是一种持续性的微生态特征,而不是短期情绪波动带来的偶然变化。
核心变化:产丁酸菌减少和代谢通路紊乱
接下来,研究者进一步分析到底是哪些菌群发生了改变。
他们将所有微生物群划分为 50 个共丰度菌群模块 CAGs,这种分析方式不是只看单个菌属升高或降低,而是观察一组具有相似变化趋势和潜在功能关联的菌群模块。
在校正孕前BMI、教育水平、孕周、产妇年龄、妊娠糖尿病、抗生素、益生菌、GBS感染等因素后,研究最终识别出 15个显著改变的CAGs。
编辑
其中,AND-D 和 AND-N 组中多个产丁酸菌相关模块持续下降,包括Eubacterium、Ruminococcaceae、Faecalibacterium、Oscillospiraceae 等。
这些菌群与短链脂肪酸,尤其是丁酸的产生密切相关。丁酸不仅是肠上皮细胞的重要能量来源,也参与维持肠屏障完整性、调节炎症反应和免疫稳态。
换句话说,产前抑郁相关菌群失衡的核心,指向了一个更具体的功能问题:产丁酸能力下降。
关于一些重要产丁酸菌属详见谷禾之前的文章:
肠道核心菌属——优/真杆菌属(Eubacterium),你为什么要关心它?
肠道核心菌属——普拉梭菌(F. Prausnitzii),预防炎症的下一代益生菌
肠道重要菌属——颤螺菌属 (Oscillospira),它为什么如此神秘?
与此同时,以 Streptococcus 为主的CAG36在产前抑郁相关样本中升高。
结合既往研究中Streptococcus与炎症、抑郁状态之间的关联,这一变化也提示母体肠道微生态可能向更促炎的方向偏移。
功能层面:脂肪酸和氨基酸代谢通路异常
菌群组成变化之外,研究还进一步做了功能预测。
功能预测还显示,抑郁阶段和非抑郁阶段都存在多条代谢通路异常,包括:
编辑
多不饱和脂肪酸与胎儿脑发育、神经细胞膜结构和炎症调节有关;氨基酸代谢则与神经递质合成、抗氧化能力和基础代谢密切相关。
这部分结果进一步说明:产前抑郁相关菌群失衡,可能不仅是菌群结构变化,还涉及母体肠道代谢功能的改变。
但这还只是母体菌群层面的发现。下一步更关键的问题是:这些菌群变化,是否真的和婴儿后续神经发育表现有关?
在明确产前抑郁孕妇存在持续性母体菌群失衡之后,研究进一步探讨了:这些孕期菌群变化是否会影响婴儿神经发育。
婴儿自身菌群:并非主要解释因素
研究者首先分析了婴儿出生后的肠道菌群,共纳入 290份婴儿粪便样本进行 16S rRNA 测序。
结果显示,影响婴儿肠道菌群组成的主要因素是采样时间、分娩方式和喂养方式,其中采样时间的影响最大。
编辑
这说明婴儿出生后肠道菌群本身处于快速建立和变化阶段,且明显受到出生方式、喂养方式等因素影响。
母亲是否存在产前抑郁症状,并没有显著影响婴儿出生后的菌群整体组成。
编辑
这表明婴儿自身菌群的波动很大,很难作为母亲情绪与婴儿神经发育之间关联的中介因素。
母婴菌群垂直传递证据有限
分析母婴共享的 ASVs 后发现,整体共享数量不多。只有一个Clostridium sensu stricto 1 相关 ASV 在产前抑郁风险组中共享率较高(P=0.034),并与婴儿神经发育评分存在一定关联趋势。但该 ASV 在极少数样本中出现,不足以解释整体神经发育差异。
编辑
由此可见,母婴菌群垂直传递并不是本研究中主要的机制线索。
孕期母体菌群更关键
研究者在校正母亲年龄、孕前 BMI、孕周、教育水平、妊娠糖尿病、抗生素和益生菌使用等因素后发现:
编辑
也就是说,这些菌群模块丰度越低,婴儿在认知、问题解决、个人-社会能力等方面的表现可能越弱。
编辑
婴儿出生后的菌群不构成主要中介。母婴垂直传递有限,婴儿肠道菌群受时间、分娩方式和喂养方式影响更大。
孕期母体菌群失衡可能是核心机制。特别是产丁酸菌相关模块下降和代谢通路功能扰动,与婴儿早期认知和社交能力存在正相关。
产前抑郁可能通过影响母体肠道菌群代谢环境,改变胎儿脑发育微环境,从而在婴儿早期表现为认知和社交能力下降。
为什么要做FMT验证?
因为孕期情绪状态、饮食、睡眠、家庭环境、遗传背景、妊娠并发症等因素,都可能同时影响母体菌群和婴儿发育结果。
因此,需要可以尽量把“菌群因素”从复杂的人群背景中单独提取出来。
FMT模型怎么做?
研究者从产前抑郁风险女性和健康对照女性中选择粪菌供体,将其菌群分别移植给无菌雌鼠,之后让小鼠妊娠,并观察孕鼠和后代的变化。
编辑
动物实验主要分为三组:
• Control_M组:接受健康对照女性菌群;
• AND_M组:接受产前抑郁风险女性菌群;
• AND + butyr_M组:接受产前抑郁风险女性菌群,同时在孕期补充丁酸。
编辑
FMT模型是否成功建立?
从菌群组成看,移植后小鼠的肠道菌群能够较好地反映对应供体来源。
注:E18.5,指胚胎第18.5天,接近小鼠足月分娩前阶段。
编辑
这说明FMT模型基本建立成功,后续观察到的母体和子代差异,可以进一步用于评估AND相关菌群的潜在作用。
产前抑郁相关菌群影响了后代学习记忆表现
研究者在后代小鼠12周龄时进行 Morris水迷宫实验,用于评估学习和空间记忆能力。
编辑
结果显示,与Control_M组相比,AND_M组后代在水迷宫测试中表现出明显的认知受损特征:
编辑
这些结果说明,接受产前抑郁风险女性菌群的孕鼠,其后代在学习记忆能力上出现下降。
值得注意的是,开放场实验中,AND_M组后代在活动距离、中心区停留时间、进入中心区次数等指标上没有显著差异。这提示AND相关菌群在该模型中更明显影响的是认知和学习记忆相关行为,而不是广泛诱导焦虑或抑郁样行为。
总的来说,在无菌小鼠FMT实验中,研究者进一步看到:仅仅移植AND相关母体菌群,就可以诱导后代出现认知行为异常。
这说明,产前抑郁相关菌群不只是一个伴随现象,而可能是参与子代神经发育异常的重要中介因素。
在人群研究中,产前抑郁症状、母体菌群失衡和婴儿神经发育下降之间存在关联。而在无菌小鼠实验中,研究者进一步看到,仅仅移植AND相关母体菌群,就可以诱导后代出现认知行为异常。
这说明,产前抑郁相关菌群不只是一个伴随现象,而可能是参与子代神经发育异常的重要中介因素。既然产前抑郁相关菌群本身能够影响后代认知表现,下一步就需要了解:它是通过什么路径影响胎儿脑发育的?
从动物实验和多组学结果来看,机制主要集中在几条连续线索上:
编辑
母体肠道:紧密连接蛋白下降,肠屏障受损
研究者首先观察孕鼠肠道屏障状态。结果显示,接受 AND 相关菌群的孕鼠,结肠组织中多个紧密连接蛋白表达下降,包括 claudin-1、ZO-1 和 ZO-2(下图a–d)。
编辑
这些蛋白是维持肠上皮屏障完整性的关键结构。它们下降,说明肠道屏障稳定性变差,肠腔内微生物相关成分或炎症刺激物更容易影响母体系统环境。
也就是说,AND 相关菌群进一步影响了母体肠道屏障功能。
母体和胎儿脑炎症信号同步增强
在肠屏障受损的同时,研究者还检测到母体炎症水平升高。
与对照组相比,AND_M 组孕鼠血清中的 TNF-α 和 IL-1β 水平均升高(下图e、f)。
编辑
这提示 AND 相关菌群可能诱导母体系统性低度炎症反应。
更关键的是,这种炎症信号并没有停留在母体端。胎儿小鼠脑组织中同样出现炎症相关变化:ELISA 结果显示,AND_M 组胎儿小鼠脑内 TNF-α 和 IL-1β 水平升高(下图j、k)。
编辑
转录组分析也支持这一点。AND_M 组胎儿小鼠脑中多条炎症相关通路被激活,包括 TNF 信号通路、IL-17 信号通路、Toll-like receptor 通路、NOD-like receptor 通路、趋化因子和细胞因子相互作用通路等(下图a、c)。
编辑
这说明,AND 相关菌群可能通过“肠屏障受损—母体炎症增强—胎儿脑炎症微环境改变”这一方式,参与胎儿脑发育异常。
胎儿脑代谢:PUFA 和氨基酸代谢异常
除了炎症,研究者还对胎儿小鼠脑组织做了代谢组分析。
结果显示,AND_M 组胎儿小鼠脑内代谢谱与对照组明显不同(下图g)。其中,一个突出的变化是多不饱和脂肪酸(PUFA)相关代谢通路下降,包括亚油酸、α-亚麻酸、花生四烯酸等相关代谢路径(下图k)。
编辑
具体代谢物上,AND_M 组胎儿脑中 anandamide、PC(14:0/20:4) 等脂质相关分子下降(下图h、i)。这些分子与神经细胞膜结构、突触功能、神经炎症调节都有关系。
编辑
同时,氨基酸相关代谢也受到影响。例如 L-alanine 水平下降(图j),并伴随半胱氨酸、甲硫氨酸、牛磺酸等相关代谢路径异常。
胎儿脑组织:突触和脂质代谢相关基因变化
转录组结果进一步补充了这一机制链。
在 AND_M 组胎儿脑中,脂质代谢相关通路和突触相关通路下调,包括谷氨酸能突触、5-羟色胺能突触等相关信号(图c)。
编辑
同时,关键基因如 Pla2g4b、Pla2g4d 表达下降(图e、f)。
编辑
综合来看,AND相关菌群可能通过多个相互关联的环节影响胎儿脑发育:
这些变化共同指向一个结果:胎儿脑发育所依赖的免疫和代谢环境被扰动,最终可能表现为后代认知功能下降。
既然前面的菌群结果反复指向产丁酸菌减少,而动物模型中也观察到肠屏障和炎症异常,那么如果补充丁酸,是否能够部分逆转这些异常?
研究者进一步设置了 AND + butyr_M 组:在接受 AND 相关菌群移植的基础上,于小鼠孕期补充丁酸,观察能否逆转部分异常表型。
丁酸补充提高了胎盘丁酸水平
结果显示,与 AND_M 组相比,AND + butyr_M 组胎盘丁酸水平明显升高。
编辑
这说明丁酸补充改变了模型中的丁酸供应状态,也为后续观察行为、炎症和代谢变化提供了基础。
后代认知行为得到部分改善
在 Morris 水迷宫实验中,丁酸补充组后代的认知表现有所改善。
与 AND_M 组相比,AND + butyr_M 组后代的小鼠学习记忆表现有所改善:
编辑
说明,丁酸补充可以部分缓解 AND 相关菌群导致的学习记忆能力下降。不过需要注意,这里是部分改善,并不是完全逆转所有行为异常。
胎儿脑代谢异常,出现恢复趋势
小鼠代谢组结果进一步显示,丁酸补充后,AND_M 组中被下调的部分 PUFA 代谢和氨基酸代谢通路出现恢复趋势。
编辑
PUFA 代谢与神经细胞膜结构、突触功能和炎症调节有关;氨基酸代谢则与神经递质、抗氧化能力和脑发育基础代谢密切相关。因此,这一结果提示,丁酸可能通过改善胎儿脑内脂质和氨基酸代谢环境,参与神经发育保护。
炎症信号和肠屏障损伤也有所缓解
小鼠实验的转录组结果显示,丁酸补充后,小鼠胎儿脑内部分炎症相关基因表达下降,例如 ccl21b、cd14、ms4a2 等;同时,脂质代谢相关基因 Pla2g4b 表达升高。
ELISA 结果也显示,AND + butyr_M 组胎儿脑内TNF-α 和 IL-1β 水平下降。
丁酸补充的影响并不只体现在胎儿脑代谢上。
在小鼠母体端,丁酸补充还部分恢复了结肠紧密连接蛋白表达,包括 claudin-1、ZO-1、ZO-2,并降低了母体血清中的炎症因子水平。
编辑
这些结果提示,产丁酸菌减少及丁酸不足,可能是 AND 相关菌群影响子代神经发育的重要机制节点。
更准确地说,产前抑郁相关菌群可能通过削弱产丁酸能力,影响母体肠屏障和炎症状态,并进一步扰动胎儿脑内代谢环境;而丁酸补充能够部分缓解这些变化。
但这仍然是动物实验结果,不能直接推导为临床建议。对于临床和健康管理场景,更稳妥的理解是:围产期微生态干预可以重点关注产丁酸菌、膳食纤维摄入、短链脂肪酸代谢能力和肠屏障状态。
过去在围产期健康管理中,情绪问题、肠道问题、营养问题和婴儿发育问题,往往是分开处理的。
这项研究提示,这些问题之间可能存在更深的连接。产前抑郁症状并不只是一个心理状态,它可能伴随母体肠道菌群重构,尤其是产丁酸菌减少,并进一步影响肠屏障、炎症反应、胎儿脑内多不饱和脂肪酸和氨基酸代谢。
也就是说,孕期情绪风险背后,可能有一部分生理和微生态基础可以被更早观察到。
围产期情绪管理可以前移,并做风险分层
这项研究显示,孕早期、孕中期和孕晚期的EPDS评分升高,都可能与婴儿后续神经发育表现下降有关。
临床产前抑郁筛查不应只集中在孕晚期或产后。孕早期建档时,就应该开始关注情绪风险。
同样是情绪风险,有些孕妇可能主要受压力、睡眠、家庭支持等因素影响;也有一部分孕妇,可能同时伴随肠道微生态、炎症和营养代谢方面的问题。
产丁酸菌,值得成为孕期微生态评估中的重点观察方向。在该研究中,产丁酸菌Eubacterium、Faecalibacterium、Ruminococcaceae、Oscillospiraceae 等相关菌群模块在产前抑郁风险样本中下降,并且与婴儿神经发育评分存在关联。
编辑
<来源:谷禾健康肠道菌群检测数据库>
实际评估中,核心菌属中这些产丁酸菌以及丁酸盐、丙酸盐、乙酸盐等短链脂肪酸指标,都可以作为观察产丁酸能力和肠道代谢支持状态的线索。
如果这类指标已经显示出不足,即使孕妇还没有明显情绪问题,也可以提示其肠道生态和代谢环境可能存在潜在风险。后续管理就可以更早关注她的饮食结构、膳食纤维摄入、肠道症状、睡眠状态以及炎症相关风险,而不是等到情绪或消化问题明显后才处理。
编辑
<来源:谷禾健康肠道菌群检测数据库>
这类信息不一定直接指向某种疾病,但可以帮助管理者更早识别需要重点关注的人群。但筛查只是第一步,还可以对情绪风险孕妇做进一步分层。
如果孕妇已经出现EPDS评分升高或明显情绪风险,肠道菌群检测可以辅助判别:这个情绪风险背后,是否同时存在肠道微生态和代谢环境异常。
若同时观察到产丁酸菌减少、短链脂肪酸能力不足、肠屏障压力或炎症相关指标异常,那么管理重点除了在心理支持上,也需要同步考虑饮食结构、膳食纤维摄入、肠道症状改善、睡眠和炎症风险管理。
编辑
<来源:谷禾健康肠道菌群检测数据库>
面向孕期健康的转化思路
肠道菌群检测适合嵌入临床已有的孕期评估流程,作为情绪筛查、产科评估和营养评估之外的补充信息,帮助医生判断是否需要进一步联合营养、肠道或生活方式干预。
在健康管理中,把菌群检测放进孕期服务流程中,比如孕早期建立肠道菌群基线状态,孕中晚期结合饮食、睡眠、肠道症状和菌群变化做再评估。
作为产品开发来说,这篇研究提供了一个更具体的思路。有转化价值的方向,可能是把产品功能落到产丁酸能力、短链脂肪酸生成、肠屏障支持和营养代谢这些环节上,设计检测、干预方案。
编辑
未来的围产期健康管理,会越来越强调前置识别。
不是等到婴儿发育问题出现后再回头寻找原因,也不是等到孕妇症状明显后才开始处理,而是在孕期就尽量识别那些可能影响母体状态和胎儿发育环境的信号。
情绪状态是信号,肠道菌群也是信号,营养和炎症状态同样是信号。
这篇研究让我们看到,这些信号之间可能存在联系。肠道菌群不是全部答案,但它可以成为理解孕期母体状态、进行风险分层和制定管理策略的重要入口。
主要参考文献
Zhou, Fangyue, et al. “Antenatal depressive symptoms impair offspring neurodevelopment by inducing maternal gut microbiota dysbiosis during pregnancy.” Gut Microbes 18.1 (2026): 2672188.
谷禾健康
编辑
在全球范围内,乳腺癌已成为女性发病率最高的恶性肿瘤,同时也是导致全球癌症相关死亡的第四大原因之一,严重威胁着女性的生命健康。为了最大程度降低复发风险、延长生存期,辅助化疗几乎是绝大多数乳腺癌患者的必经之路。然而,化疗在带来生存希望的同时,也常常伴随着一系列令人痛苦的副作用。其中,癌症相关疲劳便是最为常见、也最容易被忽视的问题之一。
对于许多乳腺癌患者来说,化疗的艰辛不仅在于治疗本身,相比于脱发、恶心等常见副作用,更在于一种挥之不去的、深入骨髓的疲惫感。这种疲惫并非休息一下就能缓解,它有一个专业名称——癌症相关疲劳(Cancer-Related Fatigue,简称 CRF)。它正悄然影响着无数患者的生活质量,甚至可能比疾病本身更令人困扰。
很多人会觉得,“化疗累一点不是很正常吗?休息休息就好了。” 但事实上,癌症相关疲劳绝非简单的身体劳累,它有着明确的医学定义。
美国国家综合癌症网络(NCCN)将其描述为一种持续存在、令人痛苦的身体、情感和 / 或认知层面的疲惫感,这种疲惫与近期的活动量不成比,会严重干扰正常生活,比如无法完成家务、难以专注交流、甚至连起床都觉得费力。
更关键的是,这种疲劳很难通过常规休息缓解。哪怕患者睡足 10 小时,依然会觉得浑身无力、精神涣散,这种持续性的消耗,比身体上的疼痛更易击垮患者的心理防线。
研究数据显示,超过90%的化疗患者会经历癌症相关疲劳,而在乳腺癌患者群体中,由于常需要接受多种治疗手段(如手术、放化疗、内分泌治疗等),疲劳的发生率和严重程度更高。高达30%的乳腺癌幸存者在治疗结束后数年,仍被重度疲劳所困扰。
这种长期疲惫不仅限制了她们的身体活动能力,还阻碍了重返工作岗位的步伐,对心理和社交生活造成了深远影响。癌症相关疲劳的危害远不止于主观感受上的不适。研究证实,疲劳的严重程度与患者的生活质量呈显著负相关,甚至可能影响生存结局。
尽管如此,目前医学界对癌症相关疲劳的内在发生机制仍知之甚少,这也导致临床上缺乏足够有效的、基于循证医学的干预手段。传统的治疗手段,如睡眠指导、运动疗法、心理干预等,虽然有一定帮助,但对于中重度疲劳的患者往往效果有限。这也使得寻找有效的治疗靶点、开发针对性干预措施变得尤为迫切。
随着人体“第二基因组”——肠道菌群研究的深入,科学家们开始将目光投向了我们的肠道。肠道中庞大的微生物生态系统不仅在消化吸收中发挥重要作用,更是人体最大的免疫器官,并通过复杂的神经-免疫-内分泌网络与大脑进行双向沟通,形成所谓的”肠-脑轴”。越来越多证据表明,肠道菌群可能在癌因性疲劳的发生发展中扮演关键角色。
化疗药物在杀死癌细胞的同时,往往也会攻击肠道中的有益菌群,导致菌群结构失衡。当肠道菌群失去平衡,肠道这道天然屏障就会受损出现“肠漏”,原本被“关”在肠道内的微生物产物和某些神经活性代谢物质,就可能进入血液循环。这些物质会沿着“肠-脑轴”激活神经、免疫和内分泌等多条通路,促使体内释放出一系列炎性因子和活性物质(比如IL-6、脂多糖等)。这些物质可能引发神经炎症,对中枢神经系统产生影响,最终表现为一种难以缓解的疲惫感。与此同时,这种内在变化还可能影响患者的行为,比如让人不自觉地减少活动、不愿社交,从而进一步加重疲劳的恶性循环。
2026年,发表在国际知名肿瘤学期刊《Frontiers in Oncology》上的一项最新前瞻性队列研究,该研究不仅证实了肠道菌群在化疗疲劳中的核心作用,最新的研究发现,我们或许可以通过分析患者化疗前的肠道菌群特征,提前预测她们在治疗过程中可能出现疲劳的风险。这为早期干预、预防严重疲劳的发生开辟了全新的思路。通过该研究深入探讨肠道菌群如何成为预测化疗疲劳的”生物密码”。
编辑
为了探究肠道菌群与癌因性疲劳之间的真实因果与预测关系,苏州大学的研究团队设计了一项严谨的前瞻性队列研究。与以往只能观察“当前状态”的横断面研究不同,前瞻性研究的特点在于它能预见未来,通过在事件发生前就开始收集数据,而不是回顾过去发生的事情。这样的设计能够避免回忆偏差,更准确地揭示因果关系和预测模型。
研究团队在2021年期间,从两家三甲医院招募了100名即将首次接受辅助化疗(共四个周期)的女性乳腺癌患者。为了确保研究的纯粹性,采用严格的入组标准:患者在入组前均没有精神疾病、胃肠道疾病、血液或内分泌系统疾病,且在过去三个月内未使用过抗生素或益生菌。这些严格的排除标准,旨在最大程度地保证所采集到的肠道菌群样本能反映其“原生态”,排除其他疾病或药物的干扰。所有患者均在开始辅助化疗之前入组,确保可以获得她们的”基线数据“——也就是在化疗前还未对肠道菌群产生影响的状态。采用配对粪便和血液样本,以探索潜在的神经免疫-内分泌途径。
为什么特别关注“第三个化疗周期”?
临床经验和既往纵向研究表明,接受四个周期化疗的乳腺癌患者,其疲劳感往往在第三个周期达到顶峰。此时,化疗药物的累积毒性最大,患者的生理和心理承受力往往处于临界点。
如果在这个阶段出现中重度疲劳,极易导致化疗减量甚至中断,直接影响患者的生存预后。因此,精准预测并干预第三周期的疲劳,具有极高的临床价值。
研究人员在患者化疗前(基线)收集了她们的粪便样本、血液样本,并进行了详细的疲劳量表评估(包括癌症疲劳量表CFS和视觉模拟疲劳量表VAFS)。
1
癌症疲劳量表
癌症疲劳量表(Cancer Fatigue Scale, CFS)由日本学者Okuyama于2000年开发的,广泛用于评估癌症患者疲劳症状,该量表包括躯体疲劳、情绪疲劳、认知疲劳三个维度,共15个条目。每个项目均采用5分制李克特量表(1-5)进行评分,总分范围为0-60。分数越高,表示疲劳越严重。
2
视觉模拟疲劳量表
视觉模拟疲劳量表(Visual Analog Fatigue Scale, VAFS)用于使用具有11个等级的标尺评估患者的疲劳水平,从“我不觉得累”到“我觉得筋疲力尽”。VAFS采用0-10的数值评分。
0表示无疲劳,1-3表示轻度疲劳,4-6表示中度疲劳,7-10表示重度疲劳。
随后,在患者进行到第三个化疗周期时,再次进行随访评估。根据第三周期的VAFS评分,患者被分为两组:
16S rDNA测序和微生物多样性数据分析
该项目所有患者的粪便样本,使用杭州谷禾提供的专用常温保存管进行采集和储存,并在谷禾实验室完成了16S扩增子测序及生物信息分析。
样本采用专用的DNA提取试剂盒(GHFDE100 DNA isolation kit)从粪便样本中提取细菌总基因组DNA,对16S rDNA基因的V4高变区进行PCR扩增。采用Illumina NovaSeq 6000高通量测序平台测序,结合生物信息学分析流程(如VSearch聚类、SILVA数据库注释等),计算得到从门到属各个分类层级的微生物相对丰度。
16S扩增子测序的临床转化价值
在众多微生物组学技术中,16S扩增子测序在临床队列探索中具有不可替代的价值。其优势主要体现在:
研究结果发现:
基线时,Y0组和Y1组在躯体疲劳、认知疲劳、疲劳总评分(CFS评分)和疲劳程度(VAFS评分)方面无显著差异(P >0.05)。
然而,在第三个化疗周期,观察到两组之间在身体疲劳、情绪疲劳、疲劳总评分和疲劳程度方面存在显著差异(P< 0.05),Y1组的所有评分均高于Y0组。而在化疗开始前,那些后来在第三周期发展为中重度疲劳(Y1组)的患者,其肠道菌群结构已经与轻度疲劳(Y0组)患者出现了显著差异。这表明,肠道菌群并非在化疗后才被动改变,而是在治疗开始前就可能决定了个体对化疗毒副反应的易感性。
1. 菌群失衡的早期信号:
B/F比值升高与变形菌门增殖
在门水平上,肠道菌群主要由拟杆菌门 、厚壁菌门 、变形菌门、梭杆菌门 (Fusobacteria) 构成,这四大菌门的总和占比均超过了菌群总数的95%。进一步研究发现,中重度疲劳组患者在化疗前的拟杆菌门/厚壁菌门比值(B/F比值)显著高于轻度疲劳组(1.15 vs 1.03, P = 0.043)。
注:B/F比值长期以来被视为衡量肠道菌群健康状况的宏观指标之一,其升高通常与肥胖、炎症性肠病等多种代谢和炎症性疾病相关,暗示着肠道微生态的失衡。
更值得注意的是,中重度疲劳组患者肠道内的变形菌门丰度显著增加(8.03% vs 5.01%, P = 0.039)。变形菌门被誉为“微生物界的杂草”,其在肠道中的过度扩张是菌群失调的典型标志。变形菌门下包含了大量潜在的致病菌,在大肠杆菌、沙门氏菌、幽门螺杆菌等常见致病菌中都占主导地位,它们大多属于革兰氏阴性菌,其细胞壁外膜富含脂多糖(LPS,即内毒素)。
注:LPS是引发人体全身性炎症反应的强烈触发器,其水平的升高意味着肠道内存在一个潜在的“炎症火药库”。
在菌群多样性方面,两组之间的α多样性无显著差异(Shannon指数P = 0.505,Simpson指数P = 0.820,Chao1指数P = 0.326);β多样性分析也显示两组菌群结构整体相似(ANOSIM及PERMANOVA分析P值均大于0.05),主坐标分析结果见图1。
图1:两组患者肠道菌群的α多样性与β多样性分析
编辑
虽然整体多样性指数(如Shannon, Simpson, Chao1)无显著差异,但PCoA图显示两组样本在空间分布上略有分离趋势,预示着特定菌群的丰度已悄然改变。
2. 产短链脂肪酸菌匮乏
通过LEfSe(线性判别分析效应量)深度挖掘,研究人员发现,轻度疲劳组(Y0组)患者肠道内富含考拉杆菌属(Phascolarctobacterium)和瘤胃菌科(Ruminococcaceae)等有益菌。这些细菌是肠道内著名的产短链脂肪酸菌(尤其是丁酸)。
注:丁酸不仅是肠道黏膜细胞的主要能量来源,能维护肠道屏障的完整性,还能穿透血脑屏障,发挥强大的抗炎和神经保护作用。
相反,中重度疲劳组(Y1组)患者体内这些“护城河”细菌的丰度显著降低,取而代之的是韦荣球菌属(Veillonella)、巨球型菌属(Megasphaera)以及肠杆菌目(Enterobacteriales)等条件致病菌的增多。这些菌群的富集,进一步加剧了肠道微环境的促炎状态(图2)。
图2:LEfSe分析揭示了两组患者在化疗前肠道菌群的特征性差异
编辑
红色代表中重度疲劳组(Y1)富集的菌群(如变形菌门下的γ-变形菌纲、肠杆菌目、肠杆菌科),绿色代表轻度疲劳组(Y0)富集的菌群(如瘤胃菌科下的RFN20、考拉杆菌属)。
3. 构建高精度预测模型:AUC高达0.82
基于上述发现,研究团队将基线肠道菌群特征与临床协变量结合,构建了一个多因素逻辑回归预测模型。这个模型的强大之处在于,它不仅仅依赖于单一指标,而是综合了多个维度的信息,模拟了临床决策的复杂性。
模型变量的协同解读
最终进入模型的变量包括:
◐ 菌 群 变 量
◐ 临 床 变 量
◐ 其 他 临 床 协 变 量
包括年龄、BMI、癌症分期等,尽管这些因素在单变量分析中可能与疲劳有关,但在加入了强大的菌群变量后,它们的独立预测能力被削弱。这反过来证明,肠道菌群可能是连接这些临床因素与疲劳结果的更底层的生物学中介。
结果显示,该模型预测患者在第三周期是否会发生中重度疲劳的准确率(AUC值)达到了0.82(95% CI: 0.73 – 0.90, P < 0.001)。 AUC值是衡量模型预测能力的标准,0.82意味着该模型具有“良好”到“优秀”的区分能力。
在最佳截断值下,该模型的敏感性为82.8%(能正确识别出82.8%的未来高疲劳患者),特异性为71.4%(能正确识别出71.4%的未来低疲劳患者)。这意味着,通过化疗前的一次粪便16S测序,结合简单的疼痛评估,医生就能以较高的准确率找出那些容易在化疗中严重疲劳症的高危患者,从而提前进行干预。
为了弄清肠道里的细菌究竟是如何影响大脑产生疲劳感,研究人员从100人的大队列中随机抽取了13名患者组成子队列:CRF无显著变化组(n=6)和CRF增加组(n=7)。
先导队列(n = 13)与整体队列(n = 100)在社会人口学或临床特征上无显著差异(均为 P > 0.05),验证了随机抽样子样本的代表性。对比了她们化疗前后肠道菌群和血液中神经免疫内分泌指标的动态变化。结果揭示了一条清晰的“肠-脑轴”致病链。
1
屏障破损:产丁酸菌Blautia减少与LPS泄漏
在化疗过程中,随着疲劳感加剧的患者,其肠道内的厚壁菌门,特别是经黏液真杆菌属(Blautia)的丰度出现了显著下降(P = 0.011)。Blautia是肠道内极其重要的产丁酸菌。当它减少时,肠道内短链脂肪酸(SCFAs)的产量锐减。这不仅导致肠道黏膜细胞失去营养支持,发生肠漏,还使得变形菌门产生的内毒素(LPS)趁机大量进入血液循环。相关性分析也证实,在化疗前,Blautia的丰度与血清LPS浓度呈显著负相关(图3)。
图3:肠道菌群与神经免疫内分泌指标
及疲劳评分的相关性热图
编辑
化疗前(a),Blautia与BDNF呈显著正相关,与疲劳评分(CRF)和LPS呈显著负相关。而巨球型菌属(Megasphaera)则与CRF、IL-6和NGF呈正相关,清晰地展示了“好菌”与“坏菌”的不同角色。
2
神经炎症:LPS如何抑制“大脑肥料”BDNF?
——LPS引发的免疫反应与神经炎症
进入血液的LPS会激活免疫系统(如TLR4受体),引发全身性的炎症反应,导致白细胞介素-6(IL-6)等促炎细胞因子释放。这些炎症因子和LPS能够穿透或破坏血脑屏障,引起中枢神经系统的神经炎症。
已有研究表明,在神经炎症模型中,LPS会激活大脑中的小胶质细胞。被激活的小胶质细胞会释放大量炎症介质,同时上调组蛋白去乙酰化酶2(HDAC2)的表达。HDAC2的过度活跃会抑制BDNF基因的转录,从而导致BDNF蛋白合成减少。
简而言之,LPS就像一个信号,告诉大脑的免疫系统进入战备状态,而这种“战备状态”的代价之一,就是抑制了用于日常维护和修复大脑的“肥料”(BDNF)的生产。
——BDNF浓度下降与疲劳的关系
研究还发现:疲劳加剧的患者,血清中的脑源性神经营养因子(BDNF)浓度显著下降(P = 0.035)。BDNF被誉为“大脑的肥料”,是调节神经元能量代谢、促进神经可塑性和维持情绪稳定的核心物质。其水平的下降,直接与抑郁、认知障碍和疲劳感相关。这一发现也与以往“肠道菌群影响神经营养信号”的研究结论一致。
——肠道菌群失调对疲劳的影响
结合研究结果,为我们可以清晰理解肠道菌群通过肠道-脑轴影响癌因性疲乏的机制提供了线索。
本研究中观察到的血清脑源性神经营养因子BDNF水平下降,形成炎症与神经营养支持不足之间的恶性循环。很可能是短链脂肪酸减少与全身炎症增强共同作用的关键结果,而BNDF作为神经元能量代谢与可塑性的核心调控因子,其水平降低可能直接导致中枢性疲劳的发生(图4)。
图4:肠道菌群通过“肠-脑轴”影响癌因性疲劳的机制图
编辑
化疗导致菌群失调(产SCFA菌↓,革兰氏阴性菌↑) → 肠道屏障受损,LPS入血 → 激活TLR4等通路,引发全身炎症(IL-6↑) → 炎症信号和LPS穿过血脑屏障,抑制大脑BDNF表达(BDNF↓) → 最终导致中枢性疲劳(CRF↑)。
✍ 科普延伸:与“慢性疲劳综合征”异曲同工
其实,不仅是癌症化疗患者,在普通的肌痛性脑脊髓炎/慢性疲劳综合征(ME/CFS)患者中,科学家也观察到了极其相似的菌群特征。
一篇于2025年发表在《Journal of Translational Medicine》的综述指出,ME/CFS患者普遍存在肠道菌群失调,其核心特征同样是促炎类群(如变形菌门)增加,而产短链脂肪酸的有益菌(如粪杆菌、罗斯氏菌)减少。
这种跨疾病的共性,强有力地印证了本研究的结论:化疗作为一种强烈的外部冲击,诱导或加剧了与慢性疲劳疾病相似的肠道微生态失衡模式,最终通过“肠-脑轴”的神经炎症通路,在大脑中“投射”出了难以克服的疲劳感。
这项研究的重要价值在于,癌因性疲劳本是一种主观的、难以评估的症状,通过早期肠道菌群检测结合疲劳量表评估和相关血液标志物检测,可以为临床医生和患者提供了早期干预和防控的可能性。
总体而言,苏州大学的这项研究不仅为我们描绘了肠道菌群、神经免疫内分泌系统与化疗疲劳之间的复杂网络,更进一步证实并拓展了以往的研究结论:化疗前的肠道菌群特征,有望成为预测乳腺癌患者化疗期间CRF的生物标志物,例如,通过化疗前肠道菌群检测,评估其B/F比值、变形菌门丰度及产丁酸菌的比例,将可能成为由化疗引起的癌因性疲劳的重要评估预测指标。医生可以提前介入,给予更积极、更具针对性的支持性辅助干预。
通过监测血液标志物,来动态评估干预效果。血清BDNF水平的下降与疲劳加重密切相关。在临床实践中,血清BDNF可以作为一种便捷的血液生物标志物,用于动态追踪患者的疲劳进展,为干预措施的有效性提供有力证据。
我们可以从以下几个维度构建抗疲劳防线:
肠道菌群,作为连接化疗药物、宿主免疫和中枢神经系统的关键枢纽,未来有望成为肿瘤支持治疗的核心关注点。随着16S rDNA测序等高通量微生物组学技术的普及与成本降低,个体化肠道菌群检测或将成为肿瘤精准治疗不可或缺的一环。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
谷禾健康
很多人第一次听到大肠杆菌,想到的往往是腹泻、污染、致病株、食物安全。这当然没有错。但如果我们对它的理解只停留在这里,反而会错过一个更值得追问的事实:为什么这样一种栖居于肠道、看似平常的细菌,会反复出现在现代生命科学最关键的问题之中?
它太普通了。普通到几乎不像一个能够承载重大问题的对象:它住在肠道里,个体微小,结构简单,既不神秘,也不壮观。但科学史有时恰恰如此耐人寻味——真正改变我们理解世界方式的,未必总是那些最复杂、最稀有、最令人惊叹的生命形式;相反,往往是那些足够平常、足够稳定、也足够能被反复检验的对象,最终把最深的规律慢慢显露出来。大肠杆菌正是这样一种存在。
在相当长的一段时间里,人们借助它理解代谢、遗传、信息如何在细胞中储存和传递;后来,又借助它去追问另一些更根本的问题:变化从哪里来,适应如何积累,进化究竟能不能被直接观察。
某种意义上,大肠杆菌角色的变化,也映照着生命科学自身重心的变化:从解释生命“由什么构成”,走向理解生命“如何在时间中改变自己”。如果没有大肠杆菌,我们今天看待生命的方式,恐怕会是另一种样子。
编辑
法国科学家雅克·莫诺说过一句很有名的话:
“对大肠杆菌成立的事情,对大象往往也成立。”
这句话听起来夸张,其实点出了生物学的一个核心事实:生命虽然形态万千,但很多底层规律是共通的。
从细菌到人类,从果蝇到大象,遗传、突变、选择、适应,这些机制并不只属于大型动物。区别在于,有些生命更适合被研究,而大肠杆菌恰好就是其中最理想的一种:
这些特性使原本难以直接追踪的生物学过程,被压缩到可观察、可比较、可回溯的时间尺度中。你很难在实验室里追踪一群大象几万代的变化,但你可以让一群大肠杆菌在培养瓶里经历漫长演化。
也就是说,大肠杆菌的价值不只在于方便使用,还在于它显著降低了研究生命规律的实验门槛。科学并不总是从最复杂的对象出发,往往恰恰相反:先在最容易建立因果关系的系统中,识别那些足够稳固的规律。
在很长一段时间里,大肠杆菌几乎就是实验生物学的代名词。
研究者借助它去理解:细胞如何利用营养,基因如何控制代谢,DNA 如何储存信息,信息又如何转化为蛋白质和功能。可以说,现代分子生物学最重要的一批基础知识,很多都与大肠杆菌密切相关。
但真正值得注意的是,大肠杆菌的角色并没有停留在这里。它并不是只在一个时代回答一种问题,而是在不同阶段不断被重新赋予新的研究意义。最初,它帮助人们理解生命的分子机制;后来,它又进入了另一个更难的问题:生命如何变化,变化有没有方向,进化究竟是不是一种能够被直接观察的过程。
也就是说,大肠杆菌角色的变化,某种程度上也对应着生命科学研究重心的变化:从结构与机制,走向历史与过程。
今天看,这似乎是个不需要问的问题。
但在20世纪前半叶,它并不是共识。很多科学家并不确定:细菌究竟有没有像动植物那样稳定的遗传系统?它们的变化到底是随机发生、再被环境筛选,还是环境需要什么,它们就会定向长出什么?
真正改变这一认知的,是 1943 年卢里亚和德尔布吕克做的著名实验——波动实验。
这个实验要回答的问题非常关键:
大肠杆菌的抗性,是在遇到噬菌体之后“被逼出来”的,还是在此之前就已经随机出现了?
答案是后者。
更直观地说:如果抗性是细菌遇到噬菌体后才现造出来的,那么不同培养瓶里最后出现的抗性菌数量应该差不多;但实验看到的是巨大的瓶间差异——有的瓶里抗性菌很多,有的几乎没有。这种“波动”只能由一种情形解释:抗性突变早在遭遇噬菌体之前就已随机出现,只是刚好落在了不同的时间点。
也就是说,突变先随机发生,环境再进行筛选。
这场争论表面上讨论的是抗性从何而来,本质上却是在回答一个更深的问题:生物变化究竟由需求驱动,还是由随机变异经由选择形成方向。波动实验的意义就在于,它把细菌明确纳入了达尔文式进化的框架之中。自此,大肠杆菌不再只是实验工具,它也成了理解进化本身的证据。
编辑
如果说波动实验解决的是“变化从哪里来”,那么后来的研究进一步显示,问题还不止于此。变化一旦出现,它如何在群体中扩张、替代和沉积,同样构成进化过程的一部分。
后来,科学家又在大肠杆菌身上观察到另一个重要现象:选择性扫荡。
简单说,一个细菌群体里会不断出现各种突变。大多数没什么影响,有些有害,少数有益,极少数突变则能够提高适应度。一旦某个突变让细菌长得更快、活得更好,它所在的谱系就会迅速扩张,最终压过其他谱系。
这意味着,微生物世界从来不是一潭静水。它充满竞争、替代、短暂共存和不断洗牌。进化并不只发生在漫长的地质历史中,它也发生在看似平静的实验培养瓶里。
这件事,其实和肠道里的现实非常像。
我们常把肠道菌群理解成一张“好菌、坏菌”名单,但真实情况更接近一个不断变动重组的生态系统:资源在变,环境在变,宿主状态在变,谁占优势、谁退场,也会跟着变。
如果说早期工作证明了细菌也遵循达尔文式进化逻辑,那么理查德·伦斯基启动的长期进化实验(LTEE),则进一步把进化研究推进到了另一个层次。
1988 年,伦斯基用同一祖先株建立了12个平行大肠杆菌种群,在相同条件下每天传代,并定期冻存样本。这个设计看上去朴素,却有极强的方法论意义。它不仅允许研究者比较不同平行种群在相似环境中的演化路径,也允许他们把过去某一代的细菌重新复活,与后代直接比较。
这套设计最厉害的地方在于:它把原本只能“推测”的进化,变成了可以比较、重复、甚至回放的过程。
传统的进化研究很多时候只能比较结果,较难处理“如果重来一次,会不会一样”这样的反事实问题。
而在LTEE中,平行种群相当于多次重复起点相同的进化过程,冻存样本则提供了一种可以回调历史的技术条件。进化因此不再只是事后的历史叙述,而逐渐成为可测量、可比较、可检验的实验过程。
这项实验到今天已经持续了 8 万多代,它带来的启发远不只是几组数据,而是对进化过程本身的重新理解。
第一,进化有随机性,但并非毫无方向。
突变是随机的,但自然选择不是。在相似环境里,不同种群常常会出现相似的适应方向。这说明进化不是完全无序的漂流。
第二,适应是持续积累的过程。
适应度会提高,但提高方式并不总是线性的。所谓“越来越适应”,不是一句抽象口号,而是可以被测量、比较和追踪的过程。
第三,新功能真的可以演化出来。
长期实验中,大肠杆菌展现出了新功能起源的证据。这说明生命中的“创新”并不是神秘跳跃,而可能是长期积累、历史偶然与自然选择共同作用的结果。
第四,进化不仅有结果,也有路径。
随着基因组技术的发展,科学家得以看到:哪些突变出现了,哪些被保留下来,哪些谱系彼此竞争,哪些曾短暂共存后又消失。
于是,进化不再只是“最后谁活下来”的故事,而变成了一门可以拆解过程的科学。
讲到这里,问题又回到了起点:这一切和肠道中的大肠杆菌有什么关系?
关系非常直接。
因为大肠杆菌从来就不只是实验室里的模式生物,它本来就是肠道生态的一部分。它提醒我们:菌群不是一份静态名单,而是一个不断变化的生态系统。
在多数健康人肠道中,大肠杆菌通常并不是丰度最高的成员,但它常常是对扰动较为敏感的成员之一。饮食改变、抗生素使用、炎症水平上升、环境变化,都可能使其迅速波动。因此,它往往更像一个生态信号,而不只是一个菌名。
更重要的是,同样叫大肠杆菌,不同菌株之间差异很大。有些菌株是稳定共居者,有些则可能携带毒力因子或耐药基因,在特定条件下转变为机会致病菌。
决定其角色的,不只是名称,而是菌株背景、基因组成、生态位以及它与宿主、与其他微生物之间的关系。
这也意味着,理解菌群不能停留在“有什么菌”,还必须进一步追问:它是什么菌株,具有什么功能,处在怎样的资源和选择压力之下,又如何嵌入整个生态网络之中。所谓“好菌”和“坏菌”,很多时候只是过于简化的分类语言。
真正伟大的模式生物,不是只回答一个时代的问题,而是能在不同阶段承载不同层次的提问。
大肠杆菌最初帮助人们理解代谢与遗传,后来帮助建立分子生物学,再后来,它又成为研究进化、适应、创新和历史偶然性的理想系统。
今天,当生命科学越来越重视生态系统、动态过程和宿主—微生物相互作用时,大肠杆菌又一次被重新放回新的问题框架之中。
从这个意义上说,大肠杆菌的重要,恰恰不在于它罕见,而在于它太寻常。
它是肠道里的普通居民,也是实验室里的经典模型;它看似微不足道,却一再帮助人类逼近生命最深的规律:变化如何产生,差异如何保留,竞争如何展开,系统如何在时间中形成今天的样子。
编辑
如果说,有些生物之所以重要,是因为它们庞大、复杂、或罕见;那么大肠杆菌的重要,恰恰来自它的平凡。
正是这样一个住在肠道里的常见细菌,帮助科学家证明了随机突变与自然选择的逻辑,推动了分子生物学的发展,也让进化第一次在实验室里变得可追踪、可比较、可回放。
它既属于肠道,也属于整个现代生物学的历史。
而它真正提醒我们的,也许并不只是某一种细菌的特殊命运,而是生命系统本身的基本事实:
生命从来不是静止的存在,而是一个持续变化、持续竞争、持续适应的过程。
参考文献:
Lenski, R.E. The changing roles of Escherichia coli. Nat Microbiol 11, 2–3 (2026). https://doi.org/10.1038/s41564-025-02230-1
谷禾健康
随着全球人口老龄化加速,老年人多病共存与多重用药已成为常态,这给药物疗效和安全性带来了巨大挑战。
多药联用本身在控制多重危险因素、降低心脑血管事件方面具有明确获益;很多研究指出,多种药同时使用,住院、药物不良反应与全因死亡等风险往往显著上升。更棘手的是,在老年多病共存背景下,传统以单药证据为核心的处方逻辑,在面对真实世界的系统扰动时发现,同样方案,有人获益明显,有人疗效不足,甚至在疗效不佳的同时不良反应频发。
过去我们多从肝肾功能衰退、体成分变化、血浆蛋白结合率下降、受体敏感性改变,以及药物—药物相互作用来解释这种不确定性。但近十年的研究逐渐揭示一个被低估的关键变量:肠道菌群。
肠道菌群不仅能直接参与药物的转化、活化或灭活,还可通过代谢物谱改变、炎性衰老与屏障变化,沿着“代谢—免疫—屏障”三轴形成相互强化的级联反应,从而在药代动力学与药效学层面共同放大疗效波动与毒性风险。
基于此,本文围绕肠道菌群失调这一关键因素,阐述其通过”代谢—免疫—屏障“三轴相互作用,在老年多病共存与多重用药的临床背景下,对药物吸收、代谢和疗效的影响机制,并从代表性药物和治疗场景出发,阐明临床防治要点,为后续高质量试验设计与标准化评价体系的建立提供一些思考。
我们正处在一个不可逆转的全球老龄化时代。根据联合国的预测,到2050年,全球65岁以上的人口将占总人口的16.3%。
老年人普遍多病共存
世界卫生组织(WHO)将多病共存定义为”同一人体内存在两种或两种以上慢性疾病“。这听起来像是一个简单的数学叠加,实则是复杂的生物学重构。
流行病学数据显示,老年人群多病共存的患病率从15%-43%不等,且呈指数级增长。在我们国内,随着疾病谱从传染性疾病向慢性非传染性疾病转型,”高血压+糖尿病+冠心病+脑卒中“的组合已成为老年内科门诊的标准配置。
多药联用的益处和风险
为了管理多种慢性病,患者往往需要服用多种处方药。多药联用本身并非坏事。对于控制多重危险因素、预防心脑血管事件具有明确获益。但当药物数量超过5种时,风险陡然上升,例如住院率增加、药物不良反应增加、全因死亡风险上升。
在老年多病背景下,传统以单药证据为核心的处方逻辑,面对真实世界的系统扰动时,疗效与安全性的方差显著增大。
当多病共存遇上多重用药,药物的疗效和安全性变得极不确定。药物之间可能相互作用,而复杂的生理状况也让药物反应变得难以预测。这正是当前老年医学面临的核心难题之一。
传统观点认为,老年药代动力学改变主要源于肝肾功能衰退、脂肪/肌肉比例变化、血浆蛋白结合率下降。但近十年的研究揭示,肠道菌群构成了药物代谢的第三维度,在多药联用的老年人群中,这一维度的变异可能是疗效不确定性的最大来源。
肠道菌群:老年患者用药难题的关键一环
近年来的研究逐渐明确,肠道菌群不仅与消化相关,还深度参与免疫调控、代谢稳态与屏障维护。在老年人群中,其临床意义被进一步放大,原因主要有三点:
-个体差异更大
老年人因咀嚼/吞咽能力、胃肠动力、饮食结构与营养摄入能力变化,微生物群组成在个体间波动更明显。
-易受药物与疾病共同扰动
多病共存导致慢性炎症与器官轴(如肠-肝、肠-心、肠-肺)改变;多重用药(尤其抗生素、PPI、免疫抑制/抗肿瘤药物等)可改变群落结构与代谢功能。
特定药物和药物类别对肠道菌群影响的总结
编辑
doi: 10.1080/19490976.2025.2604867
-对药物治疗的影响:机制叠加而非单点效应
既往研究常把菌群影响分为三类来讨论。
问题在于:对老年多病共存患者而言,上述三类效应往往不是并列发生,而是形成相互强化的级联反应。也就是说,微生态失衡并非仅改变某一个药物的代谢,而是通过“代谢—免疫—屏障”三系统的协同失代偿,塑造一个对药物治疗不利的内环境:疗效更易不足,毒性更易放大,且波动更难预测。
下一章节,我们来详细了解代谢—免疫—屏障,它如何形成自我维持的恶性循环,并如何在药代/药效层面制造难以预测的真实世界差异。
在老年多重慢病与多重用药背景下,肠道微生态的紊乱正成为影响药物反应变异的新兴决定因素。菌群的异常不再局限于单一微生物水平的失衡,而会通过代谢-免疫-屏障三大系统的协同失代偿,引发药物动力学(PK)和药效学(PD)的广泛扰动。理清这种多轴联动机制,是实现精准干预的前提。
编辑
doi.org/10.1016/j.arr.2026.103023
代谢轴:药物转化的失控开关
很多口服药的结局,不只由肝肾功能决定——肠道菌群也在参与转化、激活、灭活与清除。
菌群主要从两条路影响用药
1) 直接改造药物分子
部分细菌能还原/脱羧/去甲基等,把药改形态,导致疗效或毒性变化。
2) 间接改造宿主代谢能力
健康菌群产生的短链脂肪酸、胆汁酸等代谢物,可影响肝脏药物代谢酶(如CYP、UGT等)的表达与活性;当菌群紊乱时,这类代谢物谱改变,可能让药物暴露升高或波动更大。
编辑
doi: 10.1080/19490976.2025.2604867
临床例子
注:老年人/多病共存/多药并用时,即使肝肾化验正常,也可能出现半衰期延长、血药浓度异常或ADR风险上升。
当遇到解释不清的疗效波动/不良反应,除了依从性、相互作用、肝肾功能,也可以把菌群状态纳入评估。
免疫轴:慢性低度炎症,正悄悄改写药物反应
老年人常见的菌群失调会提高机体对微生物相关分子(如LPS等PAMPs)的系统性暴露(其中一种来源是肠道通透性改变,下一个轴会详细了解),从而持续激活TLR4/NF-κB等通路,形成炎性衰老背景。
这会怎样影响用药?
1) 改变药代
慢性炎症可下调或扰动肝脏/肠道的药物处置系统(如部分CYP酶、转运体P-gp等),导致同样剂量出现血药浓度更高、波动更大,不良反应风险上升。
2) 改变药效
炎症会重塑靶器官微环境与免疫状态,使药物作用靶点是否可用、反应是否到位发生变化;在免疫相关治疗(如肿瘤免疫治疗、免疫抑制治疗、部分抗炎/免疫调节药)中尤其明显。
临床上你可能看到的矛盾现象
屏障轴:肠道屏障变薄,用药为什么不稳定?
在衰老、慢病与长期用药的叠加下,肠上皮修复能力下降,紧密连接与黏液层保护减弱,“肠漏”更常见——这不只是消化问题,也会直接影响药物反应。
两个核心后果
1) 吸收变得不确定
屏障受损与局部炎症会让肠道的通透性/转运发生改变:有的药吸收偏多,血药浓度升高;有的药吸收不稳,导致同剂量下疗效忽高忽低。
2) 全身稳态被扰动(并放大前两个轴)
屏障一旦松动,细菌成分与代谢产物更容易进入循环,促进低度炎症,进而影响肝药酶/转运体与靶器官微环境,从而形成肠漏 → 炎症 → 用药更波动的恶性循环。
临床上常见的表现
三轴不是并列问题,而是一个协同加剧的闭环
代谢-免疫-屏障三轴协同恶化的最终结果,是老年多病患者体内药物的药代动力学(PK,身体对药物的作用)和药效学(PD,药物对身体的作用)发生不可预测的改变。
PK改变
肠道屏障受损影响药物吸收;菌群代谢和肝脏酶活性改变影响药物的代谢和清除。这导致血药浓度要么过高(增加毒性风险),要么过低(导致治疗失败)。
PD改变
衰老本身就可能改变药物靶点(如受体)的敏感性。菌群失调引发的慢性炎症环境可以进一步改变靶组织的反应性,使得药物效果增强或减弱,或产生非预期的不良反应。
因此,理解这个三轴互作的复杂网络,对于在老年多病患者中实现安全有效的药物治疗至关重要。
老年多病状态下肠道菌群调节药物疗效的核心机制
编辑
doi.org/10.1016/j.arr.2026.103023
在处理患有多种疾病且服用多种不同药物的老年人时,肠道细菌与药物之间的关系变得至关重要。
老年多病患者的菌群失调与药物相互作用
编辑
doi.org/10.1016/j.arr.2026.103023
氯吡格雷 Clopidogrel
氯吡格雷是动脉粥样硬化性心血管疾病(ASCVD)二级预防中最常用的抗血小板药之一。但它有一个关键前提:需要在肝脏经CYP450酶系(尤其CYP2C、CYP3A相关通路)生物活化,才能产生真正抑制血小板的活性代谢物。
在多病共存的老年人群里,我们常看到“同样用药、抑制不够、血栓风险仍高”的情况。越来越多证据提示:肠道菌群失调及其引发的代谢—免疫—屏障轴紊乱,可能系统性地削弱氯吡格雷的有效反应。
下面我们来看这到底是怎么从肠道一路影响到血小板和肝脏的。
先决定药能不能起效——肝脏活化是门槛
氯吡格雷是典型前药(它最怕的是活化环节被压住):
老年人常合并慢性炎症、代谢异常、肝脏基础疾病、肠屏障受损与菌群失调——这些因素并不是彼此独立,而是会相互放大。
再看药效端:TMAO抬高血小板反应性,出现P2Y12旁路
肠道菌群可把膳食中的左旋肉碱、胆碱代谢成TMA,再由肝脏转化为TMAO进入循环。
TMAO升高不仅是风险相关指标,也可能参与机制:它可诱导TLR4介导的信号通路,机制研究提示可能促炎/促血栓,但尚需临床因果验证。
更关键的一点是“旁路效应”:即便P2Y12被抑制,血小板仍可能通过不依赖P2Y12的激活通路被推起来,于是临床上就表现为抗血小板效果不够/耐受倾向。
是谁在调CYP开关:T细胞与炎症信号如何改写药物活化?
CYP不是单纯的代谢酶,它受免疫—炎症信号调控。T细胞参与调控肝脏CYP2C与CYP3A表达,因此不同免疫状态下,氯吡格雷活化可能走向不同方向:
肠屏障受损经肠-肝轴放大炎症,压低CYP活化
多病共存老年人常伴慢性炎症、慢性肝病与心血管疾病,这些因素可破坏肠道紧密连接,增加通透性(也就是肠漏),促使炎症信号升级。系统性炎症常见TNF-α、IL-6升高,而这类促炎因子可能下调肝脏CYP酶,让氯吡格雷更难被充分活化。
菌群失调还可能伴随FXR–FGF15信号下降,扰动胆汁酸代谢,进一步削弱屏障与代谢稳态,让炎症-屏障受损-代谢紊乱更难刹车。
另一个值得关注的线索是黏膜免疫:肠黏膜免疫受损与致病共生菌(如AIEC)定植相关,提示IL-22信号受损;这会加重菌群失调与屏障障碍,经肠-肝轴放大代谢紊乱,并间接压低氯吡格雷的生物活化能力。
小 结
衰老肠道中的菌群失调触发代谢—免疫—屏障恶性循环,削弱氯吡格雷效应。
编辑
doi.org/10.1016/j.arr.2026.103023
三轴相互放大,最终削弱氯吡格雷的抗血小板作用。
地高辛Digoxin
地高辛是经典强心苷类药物,治疗窗很窄:剂量稍低可能无效,稍高就可能出现毒性与心律失常。因此,它对任何能改变肠道吸收、菌群代谢、炎症背景与转运蛋白(P-gp)的因素都格外敏感。
在多病共存的老年人群中,我们更容易看到“同样用药,却出现疗效不足或毒性增高、波动难控”的情况。由于其药代动力学特性较为敏感,容易受到患者肠道细菌影响。
菌群代谢:Eggerthella lenta如何把药变钝?
肠道共生菌 Eggerthella lenta 可通过其相关还原酶系统(如 强心苷还原酶)将地高辛转化为药理活性更弱/无活性的代谢物(二氢地高辛,dihydrodigoxin)。微生物失调导致该菌富集,从而使血清地高辛浓度降低至治疗阈值以下,最终因对心肌的正性肌力作用不足而导致心力衰竭治疗失败。
为什么炎症状态会把“窄治疗窗”变得更危险?
菌群失调不仅影响代谢,还可能通过免疫耐受破坏(如树突状细胞相关的免疫耐受下降)推动系统性炎症。与此同时,肠道屏障受损会促进LPS移位入血,激活TLR4通路,诱导TNF-α、IL-6等促炎因子升高。
对地高辛而言,这种炎症背景的风险在于:地高辛本就与心律失常风险相关,且其毒性更容易在电解质紊乱(如低钾)等情况下被放大。炎症信号进入心脏微环境后,可能增加心肌细胞的电不稳定性,从而提高地高辛相关心律失常的风险。
P-gp 如何决定地高辛的口服吸收上限?
地高辛是经典的 P-glycoprotein(P-gp)底物。P-gp 在肠上皮细胞腔面表达丰富,可把已吸收进入细胞的地高辛外排回肠腔,从而显著限制其通过肠壁进入血液的量,影响口服生物利用度。
动物证据也支持这一点:在保留人源 P-gp、缺失小鼠 P-gp 的模型中,口服后地高辛血浆浓度显著升高,提示P-gp外排是限制暴露的重要因素。因此从理论上说,抑制肠道P-gp活性,可能改善地高辛吸收。
老年多病共存为什么使地高辛疗效更不可预测?
多种因素叠加,使多因素健康问题老年人群中的药物相互作用更具变异性与不可预测性。
小 结
微生物可通过代谢—免疫—屏障三联机制调控地高辛的药代动力学与毒性。肠道菌群失调通过三条轴影响地高辛反应。
编辑
doi.org/10.1016/j.arr.2026.103023
二甲双胍Metformin
二甲双胍(metformin)作为2型糖尿病一线用药,其疗效部分依赖健康的肠道微生态环境;相反,菌群失调可能抑制二甲双胍的治疗效果。
代谢干扰:信号通路抑制与药物代谢加速
菌群失调(特别是拟杆菌属的丰度变化)可通过特定的酶学途径干扰二甲双胍的药代动力学和药效学。
免疫调节失衡:老龄化背景下的炎症干扰
在老龄化人群中,菌群失调与免疫系统的相互作用更为复杂。
屏障功能受损:系统性代谢紊乱的恶性循环
菌群失调导致的紧密连接蛋白降解和肠道通透性增加(即肠漏),不仅影响肠道局部环境,更具有全身性影响。
临床:多病共存老年患者适应不良
在多病共存老年人群中,肠道菌群失调会驱动一种不适应性的循环,形成代谢、炎症与免疫调控异常相互交织的三联网络。
肠道菌群在该循环三条轴中的作用,对于影响二甲双胍疗效至关重要。二甲双胍可作用于肠道微生物群以帮助调节代谢过程、调控免疫反应并维持肠屏障功能;然而,老年人中由衰老与多种慢性病共同导致的重度菌群失调也被证明会对上述结局产生负面影响。
在重度菌群失调状态下,二甲双胍对各轴的有益作用被削弱,最终导致其在多病共存老年患者治疗中的有效性出现极大异质性,甚至可能治疗失败。
小 结
肠道微生物群的代谢-免疫-屏障轴相互作用调控二甲双胍反应的变异性。在老年多病共存中,菌群失调通过相互关联的机制损害二甲双胍疗效。
编辑
doi.org/10.1016/j.arr.2026.103023
免疫检查点抑制剂ICIs
免疫检查点抑制剂(如抗PD-1/PD-L1抗体)的疗效高度依赖于机体的免疫基调(Immune Tone),而肠道菌群是这一基调的关键调节者。菌群失调通过干扰代谢重编程、加剧免疫衰老及破坏屏障功能,削弱T细胞的抗肿瘤应答。
代谢:短链脂肪酸匮乏,阻碍T细胞代谢重编程
在菌群失调期间,代谢轴的异常直接抑制了免疫细胞的抗肿瘤活性。
免疫衰老与分化失衡
老龄化背景下的菌群失调会加速免疫系统的无能化和肿瘤的免疫逃逸。
屏障破坏:系统性炎症干扰
菌群失调导致的物理屏障破坏是系统性干扰的源头。
总而言之,在老年多病患者中,一个失调的肠道菌群会从能量供应、免疫细胞平衡和全身炎症状态等多个维度,全面削弱ICIs的抗肿瘤效果。
小 结
肠道微生物群紊乱会破坏肿瘤微环境中的代谢—免疫—屏障网络,从而降低免疫检查点抑制剂(ICI)的疗效。菌群失调通过三轴失衡削弱ICI效应。
编辑
doi.org/10.1016/j.arr.2026.103023
全球人口老龄化与老年人多种慢性病患病人数增加并存。当前研究持续关注肠道微生物组失调与药物疗效之间的相互作用。
为有效应对这一问题,需要对更广泛且更具效能的治疗策略开展系统性研究与实施设计,并在三个层面的相互作用中统筹考量:代谢、免疫稳态与肠道屏障完整性。采用这一多维模型,可建立全面的调控框架,使研究者能够在系统层面借助网络药理学,精准靶向微生物组与药物治疗之间的相互作用。
益生菌
益生菌是调控肠道微生物组的多种方式之一,也是最常用的干预手段之一;其通常包含多种菌株,不同菌株因独特的代谢特征而产生不同治疗效应。
某些益生菌代谢产生的常见代谢物为短链脂肪酸(SCFAs)。研究表明,SCFAs可与CYP450酶(药物代谢酶家族的重要组成部分)直接相互作用;同时,SCFAs还可通过激活TLR/NF-κB通路增强机体免疫反应,并促进肠上皮细胞中紧密连接相关蛋白的生成。
与代谢类药物联用
多项研究提示,与不同种类的乳酸杆菌属和双歧杆菌属益生菌联用,可显著增强胰岛素、二甲双胍等降糖治疗的获益,其核心可归结为两条菌群介导的代谢调节路径:
不过总体来说仍然缺乏足够的预临床/小规模临床研究,高质量 RCT仍然不足。
-临床证据
胰岛素 + 乳酸杆菌
在1型糖尿病以及未使用其他降糖药的2型糖尿病人群中,联用可降低HbA1c;且这种改善与有益菌群上升(如 Bifidobacterium animalis、Akkermansia muciniphila)相关联。
二甲双胍 + 复合益生菌
例如以 L. rhamnosus Probio-M9、L. casei、L. plantarum P-8、以及 B. animalis subsp. lactis V9/M8(Probio-M8)等组成的组合,在与二甲双胍联用时可提升SCFAs水平,并通过改善胰岛素敏感性增强血糖调控。
抗感染与抗菌生态位竞争
乳杆菌补充剂具有一定的抗微生物效应,可在感染的预防与辅助治疗中发挥作用。其可能机制包括产生多种代谢物并改变局部理化环境,例如:
-代表性联合策略
Lacticaseibacillus paracasei LC11 + 蔓越莓 + D-甘露糖
可降低泌尿道感染复发(特定人群研究)。
乳酸杆菌/双歧杆菌 + 幽门螺杆菌三联疗法
提高根除率、并有望改善疗程耐受性。
肿瘤治疗支持
化疗与放疗常诱发显著的肠道菌群紊乱与黏膜损伤,进而表现为腹泻、黏膜炎、营养不良、炎症升高等一系列问题;在老年肿瘤患者中,这些问题更可能放大为剂量下降、延迟治疗甚至停药。
益生菌在这一场景下的价值更多体现为支持治疗。其有效性可归因于其能够稳定受损的肠道屏障并调节炎症和代谢。
鼠李糖乳杆菌GG+长双歧杆菌+嗜酸乳杆菌+粪肠球菌的组合
该组合已被证明能抵消这些影响。它们通过重建肠道紧密连接和减轻炎症来实现这一目标。
临床证据支持这一屏障恢复的重要性,它已与宫颈癌患者放疗引起的腹泻减少28%相关,从而减少了抗腹泻药洛哌丁胺的使用。
Bifidobacterium BB-536
可通过增加CD8⁺ T细胞向肿瘤浸润,增强抗PD-1免疫检查点抑制剂的疗效。
此外,益生菌通过减少体重增加、低密度脂蛋白(LDL)水平和与多西他赛治疗相关的菌群失调,有助于稳定代谢紊乱。
这些干预措施提高了患者的功能评分并改善了整体生活质量。总之,将益生菌纳入癌症治疗方案中可作为一项重要的支持性措施,有效减少肿瘤治疗相关的附带损伤,并提高患者对治疗方案的耐受性和依从性。
益生菌来源BEVs的跨器官信号:增强抗PD‑1免疫治疗的潜力
发表在《Nature Communications》的一项研究显示,肠道共生益生菌——双歧杆菌(Bifidobacterium)可释放细菌来源的细胞外囊泡(BEVs),这些BEVs能穿越肠屏障被机体吸收,并远程富集于肺癌肿瘤组织。
研究发现,BEVs可被肿瘤细胞摄取,通过TLR4–NF-κB信号上调肿瘤细胞PD-L1,并增强肿瘤微环境中免疫细胞的功能。
编辑
doi.org/10.1038/s41467-025-58553-4
动物实验中,联合给予BEVs和抗PD-1抗体可显著抑制肿瘤生长,较单用抗PD-1效果更佳。
编辑
doi.org/10.1038/s41467-025-58553-4
该机制提示,益生菌可能通过囊泡信号跨器官调节作用,帮助提升免疫治疗(如PD-1抑制剂)疗效。这为老年群体通过益生菌进行辅助抗肿瘤免疫调节提供了全新理论依据。
益生元
益生元(如菊粉与抗性淀粉)可作为有益菌群(如Faecalibacterium、Roseburia)的选择性底物,通过对有益菌的间接作用优化代谢—免疫串扰。
相较活菌制剂,益生元通常具有制剂稳定性更好、质量一致性更高、免疫安全性风险更低等优势,因此在体弱老年人或多病共存人群中,更适合作为低风险的长期辅助干预。
益生元的价值不止于改善菌,还可以作为饮食-微生物-药物三者之间的桥梁。通过改变菌群结构与代谢谱,进而影响宿主对药物的反应与耐受。
茯苓多糖 + 5-FU
动物研究提示其具有一定降毒/增效潜力——例如茯苓多糖可减轻5-FU相关体重下降与肠道损伤,可能与降低促炎因子、增强屏障功能及纠正菌群失调有关。
低聚果糖 + 二甲双胍
在饮食诱导肥胖动物中,低聚果糖与二甲双胍联用较单用进一步改善血糖与体重,并降低内毒素及炎症标志物水平,同时改善菌群。
多酚类既可被菌群转化为生物活性代谢物,也可反向塑造菌群组成,因此非常适合与药物形成代谢协同的联合策略。
多酚类+药物联合治疗非酒精性脂肪性肝病
编辑
doi.org/10.1016/j.jare.2024.03.004
粪菌移植(FMT)
粪菌移植(FMT)是一种独特疗法,通过递送健康供体的功能性菌群联合体来重建肠道微生态平衡。
FMT可调节胆汁酸代谢网络,并恢复产丁酸菌(如Faecalibacterium prausnitzii)的活性,以纠正菌群失调状态。
传统FMT给药方式包括结肠镜或灌肠;而口服胶囊递送与经内镜肠内管递送等新方式显著改善了患者耐受性与依从性。
与药物联用的证据示例
肿瘤免疫治疗(PD‑1/PD‑L1)
FMT可通过免疫重塑提高ICI疗效。
炎症性肠病(克罗恩病)
一项随机试点研究提示,FMT可能提高泼尼松龙治疗患者的临床缓解率,可能与屏障修复与SCFAs恢复相关。
高血压/心血管药物反应
在动物研究中,将“氨氯地平治疗后自发性高血压大鼠”的菌群移植给未治疗大鼠,可降低血压并改善血管舒张、氧化应激与Th17浸润等系统指标;而来自氢氯噻嗪处理动物的FMT未显示类似获益,提示FMT可能转移一种“代谢编程后的微生物表型”,但关键菌种与分子通路仍待明确。
目前FMT临床研究尚未形成标准化给药方案,因此需基于个体患者及其具体健康状态制定标准化剂量策略。迄今FMT研究主要聚焦于单次或短期治疗方案,尤其是在复发性艰难梭菌感染患者中;但对与衰老相关的虚弱等慢性状态的管理,可能需要重复和/或维持剂量方案。当前研究所收集的数据表明,老龄小鼠模型可产生与人类衰老相关的参考数据。
噬菌体疗法
噬菌体治疗是一种新型策略,利用噬菌体(感染细菌的病毒)对抗耐药菌感染,具有改变抗生素耐药性感染治疗范式的潜力。
通过靶向特定微生物,噬菌体可清除耐药病原体及相关菌群(如产生β-葡萄糖醛酸苷酶的E. coli),从而降低因抗生素相关毒素导致的药物再活化和/或代谢紊乱。例如,噬菌体能够从接受伊立替康治疗患者的肠道中清除产生β-葡萄糖醛酸苷酶的E. coli,从而阻止SN-38再活化所致的肠黏膜炎。
此外,这些噬菌体还可通过IL-22依赖的再生促进杯状细胞恢复,为黏膜屏障重建提供机制基础。病原清除与黏膜屏障重建的结合,对治疗多重耐药感染具有重要临床意义,尤其适用于老年人或免疫功能受损人群。
小鼠研究显示,经饮水口服给药(每日4×10⁸ PFU,连续31天)具有安全性证据;但目前尚未报道明确的人体剂量。
通过饮水口服噬菌体以改变肠道微生物组(并具良好安全性)具有前景,但仍需进一步研究以明确长期安全性与有效性,目前也缺乏既定的临床应用时间尺度。
饮食营养干预
营养饮食策略同样是调控肠道微生物群的主要手段之一,且具有多靶点特征。通过改变饮食结构(如增加高纤维食物摄入),可提升肠道微生物多样性并改善其功能,从而构建综合防御体系。
例如,摄入抗性淀粉或富含多酚的食物可改变肠道微生物对营养物质的代谢方式,并特异性触发有利于ICI发挥作用的不同通路。
锌与N-乙酰氨基葡萄糖可通过促进紧密连接相关蛋白(如ZO-2)生成以维持肠细胞间的致密连接,同时促进MUC2产生以利于损伤后修复,从而增强肠道保护层。
对于症状多样、且常合并多重用药的老年患者,单一疗法不足以应对复杂挑战。因此,有必要建立分层、整合的管理策略,以协调上述干预之间的相互作用。
例如,将益生元与工程化噬菌体联用,可在稳定代谢、可控调节细菌群落、以及具有抗炎特点的饮食干预之间形成协同,并与免疫功能与屏障功能改善相结合。
此外,可在全面评估个体肠型、用药史及动态微生物组特征的基础上,为患者制定个体化干预方案。通过组合这些治疗策略,或可提高特定药物或药物组合的治疗效应,降低多药并用导致不良事件的风险,并提升老年人健康管理的整体照护质量。
在老龄化与多病共存叠加的现实中,肠道微生物群已从背景因素走到台前:它通过代谢、免疫与屏障三条主轴,重塑药物疗效与不良反应的边界。现有从益生菌/益生元到FMT、噬菌体与饮食等多种工具,更多是可用的起点。
面向未来,关键在于把经验性调菌推进为可计算、可验证、可迭代的精准体系。
编辑
doi.org/10.1016/j.arr.2026.103023
一方面,以单细胞测序、空间转录组与代谢通量等多组学,在老年多病模型中绘制“宿主—微生物群—药物”互作图谱,解析微生物代谢物对CYP3A4、PD-1、Claudin-18等关键节点的时空调控;
另一方面,建立多中心、纵向随访队列,将标准化菌群检测纳入常规流程(基线分型与重复采样监测),持续记录菌群谱、用药史与结局,捕捉疗效波动及耐受/耐药的演化轨迹。
与之配套的是统一标准的微生物组—药物数据库与临床级算法:让AI/机器学习在临床试验中被严格验证,把高维数据转化为可预测的反应评估和可执行的干预建议。
这些数据的验证将推动针对多病老年人的个性化“菌群-药物”管理策略,提升多重用药安全性并促进健康老龄化。
更进一步,合成生物学有望带来可递送/可响应的智能工程菌、工程化噬菌体—纳米颗粒偶联体,并以连续菌群监测提供反馈,形成“检测—建模—干预—再检测”的闭环,使干预与个体衰老轨迹同频;同时也需以长期人群研究审慎评估气候与生态变化对微生物群及健康老龄化的潜在影响。
当然,前路仍有挑战,个体差异带来的可重复性问题、长期安全性与质控标准、以及高质量随机对照证据的缺口,决定了转化必须稳扎稳打——慢即是快。但方向已清晰:在多病共存与多重用药的时代,微生物群正在成为决定疗效与风险的重要变量。
主要参考文献
Yang D, Ren D, Zhang Y, Hao Y, Yue Y, Li Q, Fan Q, Sun C, Cui M, Zhang M. The gut microbiota dysbiosis in geriatric multimorbidity: Pharmacotherapeutic implications, pathophysiological mechanisms, and precision modulation strategies. Ageing Res Rev. 2026 Jan 13;115:103023.
Preet, R., Islam, M.A., Shim, J. et al. Gut commensal Bifidobacterium-derived extracellular vesicles modulate the therapeutic effects of anti-PD-1 in lung cancer. Nat Commun 16, 3500 (2025).
Li H, Liang J, Han M, Gao Z. Polyphenols synergistic drugs to ameliorate non-alcoholic fatty liver disease via signal pathway and gut microbiota: A review. J Adv Res. 2025 Feb;68:43-62.
Al-Btoosh S, Donnelly RF, Kelly SA. Microbes and medicines: interrelationships between pharmaceuticals and the gut microbiome. Gut Microbes. 2026 Dec 31;18(1):2604867.
de Ciutiis I, Djakovic S, Cagigas ML, Masedunskas A, Smith L, Franceschi C, Fontana L. Long-term fasting and its influence on inflammatory biomarkers: A comprehensive scoping review. Ageing Res Rev. 2025 Aug;110:102797.
Herisson FM, Cluzel GL, Llopis-Grimalt MA, O’Donovan AN, Koc F, Karnik K, Laurie I, Canene-Adams K, Ross RP, Stanton C, Caplice NM. Targeting the Gut-Heart Axis Improves Cardiac Remodeling in a Clinical Scale Model of Cardiometabolic Syndrome. JACC Basic Transl Sci. 2024 Nov 20;10(1):1-15..