-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
近年来,肠道菌群检测越来越受到关注。无论是个性化营养管理、益生菌补充、慢病风险管理、体重管理,还是肠道功能改善和微生态干预,很多服务都会把肠道菌群检测作为重要参考。
肠道菌群检测也正在从科研工具逐步进入健康管理、慢病风险评估、营养干预、药物反应研究及部分临床辅助场景。
因此肠道菌群检测也越来越常见。然而,公众对肠道菌群检测的理解常常存在两个极端。
从目前的研究和应用现状来看,肠道菌群检测的意义需要放在具体场景中评估。过度放大其预测和干预能力并不科学,而因其仍在发展中就完全否定其价值也不正确。更准确地说,肠道菌群检测是一种具有参考价值的微生态评估工具,其可靠性和应用价值取决于检测目的、技术路径、质量控制、数据库基础、算法模型和解读水平。
很多消费者会觉得:不就是取一点粪便样本,送到实验室测一测,然后出一份报告吗?
从表面看,流程似乎并不复杂,甚至有些机构的报告形式也很相似:列出有哪些菌、哪些菌多了、哪些菌少了,再给出一些饮食或益生菌建议…
今天,谷禾君想结合多年肠道菌群高通量测序检测与分析的实际经验,尤其是在 CNAS 认可和质量体系管理要求下形成的质量控制实践,和大家一起客观聊聊肠道菌群检测的科学价值、应用边界与合理解读。
菌群谱是报告的底层基础,基础不稳,后面的解释就会偏
一份肠道菌群检测报告,通常可以分为几个重要板块。第一大板块就是菌群谱,也就是回答几个最基础的问题:
这一部分相当于一座大楼的水泥、钢筋和砖块,是所有后续分析的基础。后面无论是多样性分析、功能预测、营养代谢评估、炎症风险判断,还是个性化干预建议,都建立在菌群谱是否准确的前提上。
但也正是在这个最基础的环节,最容易引入技术偏差。
样本采集与保存:结果偏差可能从第一步开始
粪便样本并不是普通样本,其中含有大量微生物、宿主细胞、食物残渣、代谢产物以及可能影响后续检测的抑制性物质。
从采样完成到实验室检测之间,样本仍可能受到时间、温度、氧气暴露和运输条件等因素影响。一些对环境变化较为敏感的菌群成分,可能在保存或运输过程中发生比例变化,从而影响最终检测结果对原始肠道状态的反映。
因此,在实际检测中,通常会结合检测目标和技术路线,选择经过验证的样本保存方案,并配套明确的采样说明、运输要求和样本接收标准。需要强调的是,任何保存方式都不是对样本原始状态的“绝对锁定”,但规范化的保存和质控流程,可以尽可能减少样本在采集后到检测前发生的非目标性变化,从而提高检测结果的可靠性。
DNA提取:不同细菌被看见的机会并不一样
肠道菌群由大量不同类型的微生物组成,不同细菌在细胞壁结构、细胞膜特性以及对裂解条件的敏感性上存在差异。有些细菌较容易被裂解并释放 DNA,而有些细菌结构较为坚韧,如果裂解不充分,其 DNA 可能无法被充分提取出来。
因此,DNA 提取并不是一个简单的“把 DNA 提出来”的过程。对于粪便这类成分复杂的样本,如果提取方法没有结合肠道菌群特点进行优化和验证,就可能造成不同菌群 DNA 回收效率不一致:某些菌更容易被检测到,某些菌则可能被低估。
也就是说,检测报告中呈现的菌群比例,不仅受到样本本身组成的影响,也可能受到 DNA 提取方法、裂解强度和纯化效率等实验环节的影响。专业检测通常会通过标准化提取流程、适当的裂解策略、质控指标和方法学验证,尽量减少这类技术偏差,使检测结果更稳定、更具有可比性。
建库和测序:流程参数会影响最终读数
建库和测序是将样本中提取到的微生物DNA 转化为可被测序仪识别和读取的数据的过程。
不同技术路线对应的实验流程并不完全相同。
此外,实验室环境中的微量污染、试剂中的背景 DNA,或不同批次操作带来的细微差异,也可能在某些情况下影响检测结果,尤其是在低生物量样本或样本质量不佳时更需要关注。
因此,专业检测通常不会只依赖单一实验步骤,而是会通过阴性对照、阳性对照、标准菌群样本、重复检测、批次质控和流程验证等方式,对建库和测序过程中的潜在偏差进行识别、监测和控制,从而尽量提高检测结果的稳定性、可比性和可解释性。
原始数据到可用数据,中间不是自动生成那么简单
测序仪下机后得到的通常是FASTQ原始数据。FASTQ文件中不仅包含序列信息,也包含每个碱基的质量值。一般可能认为以为测序完成就等于结果出来。事实上,原始数据距离真正可用于分析的clean data,还有一整套质量控制流程。
质控流程决定哪些数据可以进入后续分析
这些流程包括去除低质量序列、去除接头污染、过滤过短或异常序列、识别嵌合体、合并双端序列、去除宿主污染序列、评估测序深度和样本有效数据量等。
对于宏基因组测序,还涉及更复杂的拼接、基因预测、物种注释、功能注释和丰度计算。
参数设置过松或过严,都会影响结果
如果质控参数设置过松,低质量数据会进入后续分析,带来假阳性;如果设置过严,又可能损失有效信息,导致某些低丰度但重要的菌被过滤掉。
因此,生物信息分析并不是简单套用软件流程,而是需要根据样本类型、测序技术、研究目的和验证结果不断优化。
更关键的是,同一份原始数据,使用不同的分析流程、不同的参数、不同的数据库,最终得到的物种组成可能不完全相同。这也是为什么不同检测机构之间有时会出现结果差异的原因之一。其中参考注释数据库的带来的差异是最大的,这也是我们后面会重点讲的。
数据库和注释方法是影响结果解读的重要环节
测到的这段序列,到底对应哪一种菌?
这是肠道菌群检测不可忽略的问题之一。
目前很多实验室会使用公开数据库,例如16S领域常用的Greengenes、SILVA、RDP等,宏基因组领域则可能使用NCBI、GTDB、UHGG、MetaPhlAn相关数据库等。
这些公共数据库为科学研究和方法开发提供了重要基础,但在实际检测和报告解读中,数据库是否适配人体肠道样本、是否持续更新、是否经过标准样本和真实样本验证,都会影响最终注释结果的准确性和稳定性。
这些问题在数据分析阶段看似只是“注释差异”,但进入报告解读后,可能会进一步影响菌群特征判断、功能推测、风险提示以及个性化建议。因此,肠道菌群检测的可靠性不仅取决于是否使用了某个数据库,更取决于数据库与检测场景的匹配程度、算法流程的验证情况,以及实验室对注释结果进行评估和校正的能力。
谷禾更倾向于采用一种相对稳妥的分析思路:在公共数据库的基础上,结合长期积累的人体肠道样本数据、标准菌群验证结果、算法优化经验以及注释准确性评估体系,对检测结果进行多维度综合判断。
这样既能充分利用公共数据库的开放资源和学术基础,也能根据人体肠道菌群检测的实际场景,对数据库覆盖不足、分类体系差异或算法适配性问题进行识别和校正,从而尽量减少由数据库和注释方法带来的系统性偏差。
正常参考范围决定异常判断可靠性
超标和缺乏,背后依赖的是参考范围
在肠道菌群检测报告中,最容易影响用户判断和后续决策的内容,往往是“某某菌偏高”“某某菌偏低”“某类风险相关菌增加”等提示。而这些判断并不是单纯由检测数值本身决定的,背后还依赖于一个非常重要的基础——参考范围。
所谓“超标”或“缺乏”,本质上是将个体检测结果与某一参考人群或参考数据库进行比较后得到的相对判断。因此,参考范围如何建立,直接影响异常提示的稳定性和解释价值。
参考范围并不应是简单设定的固定边界
需要建立在足够规模、来源清晰、信息完整的人群数据基础上。理想情况下,参考人群应根据年龄、地区、饮食结构、生活方式、健康状态等因素进行合理分层,并结合检测技术路线和统计方法持续优化。否则,如果参考样本量不足,或人群结构与受检者差异较大,所谓“正常范围”就可能不够稳健。
这也意味着,不同实验室、不同数据库或不同算法模型给出的异常提示,可能存在差异。例如,某个菌被提示偏高,既可能确实反映个体菌群特征的改变,也可能与参考队列样本量、分层方式、边界设定或地区饮食差异有关。反过来,某个菌被提示偏低,也可能受到数据库分辨率、注释准确性或参考范围设定方式的影响。
尤其是在涉及潜在致病菌、条件致病菌、炎症相关菌、产毒素相关菌等信息时,更需要避免把报告提示直接等同于疾病诊断。菌群检测中的“检出”不等于感染,“相对丰度偏高”也不等于一定需要药物干预。
谷禾更建议以审慎、综合的方式理解菌群检测结果:检测报告提供的是微生态层面的参考信息,而不是单独用于诊断或干预决策的依据。报告中的风险提示,需要结合个体的症状表现、既往病史、用药情况、饮食结构、免疫状态、其他实验室检查结果,以及医生或专业人员的评估进行综合判断。只有将检测结果放回到具体个体的实际背景中,才能更准确、合理地理解其意义。
CNAS 认可与实验室质量体系:检测可靠性的基础
通过上面的描述,已经了解肠道菌群检测涉及样本采集、保存运输、DNA 提取、建库测序、数据分析和报告解读等多个环节。任何一个环节控制不充分,都可能影响最终结果的稳定性和可解释性。
CNAS 认可并不意味着检测结果可以直接等同于临床诊断,也不代表所有模型解释都天然成立。但它说明实验室在认可范围内,已围绕人员、设备、方法、样本流转、质量控制、记录追溯和报告签发等方面建立了较为规范的管理体系,并接受第三方官方评审。
对于肠道菌群检测而言,这种体系化管理尤为重要。作为 CNAS 认可的肠道菌群检测实验室,在检测过程中更强调全流程质控,包括阴性/阳性对照、空白对照、批次质控、污染监测、测序质量评估和异常样本复核等环节,尽量减少批次差异、背景污染和流程波动对结果的影响。
因此,选择肠道菌群检测机构时,除了关注报告内容,也应关注其实验室资质、质控体系、方法验证和结果解释边界。对于复杂的微生态检测来说,规范的实验室体系,是结果值得被认真参考的重要基础。
编辑
如果说肠道菌群检测报告的第一层壁垒
是把菌群谱测准、注释准、解释准;
那么第二层壁垒,
就是如何基于菌群数据
进行健康状态或疾病风险评估。
疾病风险评估不是“列几个特征菌”那么简单
疾病风险评估的基础,是菌群差异是否具有参考意义
目前许多肠道菌群报告中都会设置疾病风险或健康风险评估板块。其基础逻辑是:既然某些疾病人群与健康人群存在菌群差异,那么是否可以通过一个人的菌群特征,推测其更接近健康状态,还是更接近某类疾病相关状态?
这一部分往往也是消费者最关注、同时最容易被误解的内容。很多人拿到报告后,最先看的不是有哪些菌,而是自己有没有炎症风险、代谢风险、神经系统系统风险、肠易激风险、肥胖风险、糖尿病风险等。某种意义上,这也是肠道菌群检测最具应用价值的方向之一。
科研相关性,不等于个体预测能力
尽管大量研究已经证明,过去十多年,国内外已经发表了大量关于肠道菌群与结直肠癌、炎症性肠病、肠易激综合征、肥胖、2型糖尿病、脂肪肝、痛风、抑郁、阿尔茨海默病、自闭症谱系障碍等疾病相关性的研究。这些研究为菌群风险评估提供了重要的科学基础。
但是不同疾病人群、不同疾病阶段、干预前后、治疗响应与不响应人群,往往会呈现出不同的菌群结构和功能特征。
文献差异菌不能直接等同于个体健康风险判断
科研队列和真实检测人群,并不是同一回事
这是行业中一个非常关键、但常被忽略的问题。
科研研究通常会有严格的入组标准。例如,研究者会尽量控制年龄、性别、地区、饮食、BMI、用药史、抗生素使用、基础疾病、采样时间等因素。有些研究会要求受试者在一定时间内不能使用抗生素、益生菌、泻药或特殊药物;有些研究会限制饮食;有些研究会排除合并多种疾病的人群。这样做的目的是尽量减少干扰因素,突出某个疾病与菌群之间的关系。
真实世界中的菌群影响因素更加复杂
真实检测人群:
每一个因素都可能影响肠道菌群。
文献中的差异菌,不能简单搬进报告
在严格科研队列中得到的差异菌,未必能稳定适用于现实世界中的普通检测人群。把文献中的几个特征菌简单搬进报告,用它们来判断疾病高低风险,往往是不可靠,甚至可能完全错误误导后端干预。
★ 好的风险评估模型——核心不仅是算法,更需要高质量的样本数据
很多人在谈疾病预测模型时,容易把重点放在算法上,比如机器学习、随机森林、支持向量机、神经网络、深度学习等。算法当然重要,但在肠道菌群风险评估中,更基础、更关键的因素其实是:模型训练所使用的样本质量和样本代表性。
一个模型能不能识别真实世界中的疾病相关菌群特征,首先取决于它“见过”多少真实、准确、复杂且有代表性的样本。
这里至少包括几个核心问题。
第一,样本是否涵盖了各类人群
肠道菌群受到饮食习惯、地域环境、生活方式、遗传背景、医疗体系、药物使用习惯等多种因素影响。
不同地区和生活方式的人群肠道菌群基线并不完全相同。因此,如果一个模型应尽可能涵盖足够多样的人群,否则可能会出现适配性不足的问题。
第二,样本信息是否准确
疾病状态必须有明确依据,不能只靠用户自述。比如结直肠癌样本最好有病理、肠镜或临床诊断信息支持;糖尿病样本应有血糖、糖化血红蛋白等指标;炎症性肠病应有内镜、病理、临床诊断和疾病活动度信息。
如果标签本身不准确,模型学到的就可能是噪音,而不是真实疾病特征。
第三,样本量是否足够
肠道菌群个体差异极大,同一种疾病在不同阶段、不同用药、不同饮食、不同年龄人群中可能表现出不同菌群特征。
如果样本量太小,模型容易只学到某个小队列的偶然差异,而不是疾病本身在真实世界中的稳定信号。
第四,样本是否覆盖疾病发生、发展、治疗和干预过程
很多疾病不是单一状态。例如:
一个有应用价值的模型,应尽量覆盖这些复杂状态,而不是只比较“健康人”和“典型患者”。
第五,是否有严格的验证
模型不能只在训练数据上表现好,还要在独立测试集、外部队列、不同批次样本、不同时间段样本中验证。否则就可能存在过拟合:在原始研究数据里准确率很高,一到真实用户样本中就失效。
所以,尽管现在有 AI 的出现,如果没有足够大、具有代表性、并且样本数据清晰规范的本土人群数据库,那么疾病预测仍然会面临明显局限。
因此疾病的预测疾病风险评估板块真正的壁垒,不是报告上能不能写出“风险高、中、低”,而是背后有没有足够优质、真实、可追溯、经过验证的人群样本库和模型体系。
除了样本数据本身,风险评估模型还要解决另一个关键问题:它究竟在识别什么。
★ 好的风险评估模型——不是盯着几个菌,而是理解整体微生态特征
模型要识别的是整体,不是单个菌
很多人理解菌群风险评估时,会以为模型就是看某几个菌:会把它想象成一个简单的对应关系:某个“有害菌”升高,风险就升高;某个“有益菌”降低,风险就升高。这样的理解直观,但并不准确。
编辑
肠道微生态是一个复杂网络。疾病相关信号是由多种菌之间的组合关系、相对丰度变化、低丰度关键菌、菌群多样性、生态位变化、代谢功能、炎症相关通路、毒力因子、胆汁酸代谢、短链脂肪酸生成能力等共同构成。
因此,一个成熟模型不应只依赖少数几个肉眼可见的“明星菌”。它需要从整体菌群结构中学习复杂模式。
有些风险信号,甚至高于菌群丰度和关系
某些样本看起来有害菌并不高,多样性也不错,常规菌群构成似乎比较理想,但仍可能隐藏着与特定疾病相关的微生态模式。
这些信号可能来自低丰度菌群,也可能来自菌群之间的组合关系,甚至来自报告正文中没有逐一展示的菌种或功能特征。
以结直肠癌风险评估为例
已有大量研究显示,结直肠癌患者的肠道菌群中可能存在一些相对稳定的特征变化,例如部分具核梭杆菌、脆弱拟杆菌相关毒素型菌株、消化链球菌、微小单胞菌、产毒或促炎相关菌群变化等。
但在真实人群中,不能简单用某一个菌是否升高来判断风险。因为不同个体、不同阶段、不同治疗状态下,菌群表现可能并不一致。
有些人可能某个典型菌升高明显,有些人则可能表现为多个菌群组合的轻度偏移,或者表现为功能通路层面的异常。
如果一个模型基于足够大的真实世界队列,例如大量经临床确认的结直肠癌样本,并结合健康对照、肠道疾病对照、不同年龄和不同干扰因素样本进行训练与验证,它就更有机会学习到疾病相关的综合微生态模式,而不只是机械地识别几个特征菌。
这样更有利它在实战中去判别,比如整体结构是否更接近经临床确认的疾病相关样本。这类模型在实际应用中,才更可能对复杂样本保持较好的敏感性和特异性。
风险提示不能替代临床诊断
当然,即使模型表现较好,也应坚持一个边界:菌群风险评估结果只能提示“需要关注”或“建议进一步检查”,不能直接等同于诊断。比如结直肠癌中高风险提示,应建议结合年龄、家族史、症状、粪便隐血、肠镜等医学检查进行确认,而不是仅凭菌群报告下结论。
为什么“什么疾病都能预测”的报告反而要谨慎看待?
风险评估项目越多,不一定代表报告越成熟
消费者需要特别注意一个现象:有些菌群检测报告看起来功能非常丰富,几乎什么疾病都能评估,几十种甚至上百种风险都能给出结论。表面上看,这样的报告似乎更全面,但从专业角度看,反而需要谨慎。
原因很简单:不是所有疾病都已经具备成熟、稳定、可用于真实人群评估的菌群模型基础。
不同疾病的菌群证据基础并不相同
有些疾病与肠道菌群之间的关联证据较强,样本积累较多,模型开发和验证相对更有基础。
但有些疾病目前仍处于早期研究阶段,文献结果不一致,队列样本较少,混杂因素很多,尚不足以支持面向消费者的风险预测。
明确的风险结论,需要透明的模型依据
如果一个报告对很多疾病都给出非常明确的高低风险判断,但没有说明模型来源、样本量、适用人群、验证结果和解释边界,那么它很可能不是基于真实世界大样本模型,而只是引用了文献中报道过的一些差异菌或相关菌。
这种做法的问题在于:文献中的差异菌通常来自特定研究条件下的特定队列。它们可以作为科学线索,但不一定能直接作为个体风险判断依据。
如果把多个疾病文献中的特征菌简单叠加,就可能导致很多用户在报告中同时出现多种疾病高风险。这样的结果看似敏感,实际上特异性可能很差,容易造成不必要的焦虑,也可能误导后续干预方向。
专业,是对边界的克制
专业的做法应该是:
消费者应该如何理解这一板块
对于消费者而言,看到菌群报告中的疾病风险评估,既不必恐慌,也不能完全忽视。
比较合理的态度是:把它作为一种基于肠道微生态数据的健康风险提示。
如果某项风险偏高:
低风险不等于绝对没有问题,高风险也不等于已经患病。
菌群模型评估的是一种微生态模式与疾病状态的相似性或相关风险,它的意义在于帮助人们更早关注潜在问题,并为进一步检查、生活方式调整和健康管理提供参考。
行业应该比拼证据深度,而不是报告项目数量
肠道菌群检测进入应用阶段后,报告内容越来越丰富是趋势。有价值的竞争,不应该是谁能写出更多疾病名称,而是谁能在每一个评估项目背后建立更扎实的证据链。
一个负责任,科学,公平的检测体系(CNAS认可实验室的准则),应该敢于承认边界:
这样的报告看起来可能没有那么包罗万象,但专业价值反而更高。
从风险评估的实际价值来看,报告项目的数量并不是唯一衡量标准。相比覆盖多少病种,更值得关注的是:每一项提示是否有清晰依据,是否能提供合理的下一步建议,是否有助于减少误判、过度解读或不必要的干预。
总体来看,肠道菌群疾病风险评估是一个很有前景、也很有技术壁垒的方向。更值得关注的是,从科研发现走向真实世界应用,可能需要跨过样本质量、样本规模、模型验证、本土适配、混杂因素控制和临床解释边界等多道门槛。
这才是肠道菌群检测报告第二层壁垒的核心。
在肠道菌群检测报告中,
除了菌群谱和疾病风险评估之外,
第三个越来越重要的板块,
就是营养代谢与功能评估。
肠道菌群报告的第三层壁垒:营养代谢评估=看菌推营养?
很多报告会提示维生素合成能力、氨基酸代谢、短链脂肪酸生成能力、胆汁酸代谢、脂质代谢、膳食纤维利用能力、蛋白质发酵倾向、肠道屏障相关功能等内容。
这一方向是有大量询证依据的,而且这一块菌群有着绝对的优势,会做的越来越好。因为肠道菌群并不是被动存在于肠道里的“微生物名单”,它们本身就是一个活跃的代谢器官。
大量研究已经证明,肠道菌群参与膳食纤维发酵、短链脂肪酸生成、B族维生素合成、氨基酸代谢、胆汁酸转化、色氨酸代谢、胆碱和肉碱代谢、植物多酚转化等过程。这些代谢活动与能量利用、肠道屏障、免疫调节、炎症状态、神经递质前体、血糖血脂代谢等都有密切关系。
因此,通过菌群数据去评估一部分营养代谢能力,是有科学基础的。但这里必须强调一个关键点:菌群报告中的营养代谢评估,更合理的解释评估的是菌群相关代谢潜力或菌群功能倾向。
有价值的营养评估,看三组数据如何互相校准?(谷禾的菌群营养评估结合三组数据开发)
注:谷禾的菌群营养评估结合的三组数据是指:肠道菌群数据、粪便代谢组数据、血浆代谢组数据。
更高质量的肠道菌群营养代谢评估,不应只停留在“某个菌多,所以某种营养代谢好”这种层面,而应该尝试建立菌群、粪便代谢物、血液代谢物和饮食信息之间的对应关系。
这里面至少有三类重要关系。
第一,菌群功能潜力与粪便代谢物是否一致
比如报告提示丁酸产生菌不足,同时粪便中丁酸水平也偏低,那么可以更有信心地判断肠道短链脂肪酸生成环境不足。
反之,如果丁酸产生菌不低,但粪便丁酸低,就要考虑饮食纤维摄入不足、吸收增加、样本时间点或检测差异等因素。
第二,粪便代谢物与血液代谢物是否一致
例如肠道蛋白质腐败发酵增强时,粪便中某些酚类、吲哚类、胺类代谢物可能升高;其中部分代谢物如果进入血液并进一步影响宿主代谢,血液中也可能出现相关变化。但如果只在粪便中高、血液中不高,临床意义就可能不同,更多提示局部肠腔环境变化。
第三,菌群代谢能力与宿主营养状态是否一致
比如菌群提示B族维生素合成潜力较弱,但血液中相关维生素指标正常,可能说明饮食摄入或补充剂足够;如果菌群功能弱、饮食摄入不足、血液指标也偏低,那么营养干预的依据就更充分。
这种多组学和临床营养指标的互相验证,才是营养代谢评估真正走向成熟的方向。
营养代谢评估的专业价值,在于指导方向而不是替代临床营养诊断
肠道菌群营养代谢评估真正有价值的地方,是帮助我们理解一个人的肠道生态更偏向哪种代谢模式。
这些信息对个性化营养干预很有帮助。但它的正确定位应该是:为饮食结构优化、营养补充策略、肠道微生态干预和后续检测提供依据,而不是直接诊断某种营养缺乏或疾病。
第三层壁垒的核心:从“菌有什么功能”走向“功能是否真正影响宿主”
总结来说,肠道菌群报告中的营养代谢评估,是一个有科学依据、也很有应用潜力的方向。
但它的技术门槛并不低。
因此,营养代谢板块不是报告中“锦上添花”的装饰内容,而是检验一个菌群检测体系是否真正理解肠道微生态功能的重要部分。
专业的报告可以告诉用户:你的肠道菌群具备怎样的代谢倾向,这种倾向与饮食、粪便代谢物、血液营养指标之间是否一致,以及下一步应如何更科学地验证和干预。
对消费者而言,最重要的是记住一句话:肠道菌群可以帮助评估营养代谢环境,但不能单独定义人体营养状态。
为什么第一次/基线检测 尤其重要?
第一次基线肠道菌群检测的价值:建立可靠参照系以指导后续干预策略。
很多健康指标可以多次检测后再建立趋势,但肠道菌群的首次检测有特殊意义。因为一旦开始系统干预,原始状态可能很难再被还原。
长期服用益生菌、使用抗生素、改变饮食结构、接受粪菌移植或重大疾病治疗后,菌群生态可能发生持续改变。此时再检测,只能反映干预后的状态,而无法回答“我本来是什么样”。
因此,第一次基线检测,可以为后续观察和比较提供一个重要参照。
编辑
第一次基线检测就像一张干预前照片
它不一定完美,也不代表永久状态,但可以记录个体在某一时间点的肠道菌群结构特征和一定程度的功能潜力,呈现当时的微生态背景。
比如菌群多样性和稳定性如何,优势菌群结构是否与年龄、地域、饮食和健康状态大致匹配,是否存在明显偏离常见健康人群范围的模式,短链脂肪酸产生菌、黏液层相关菌、蛋白发酵相关菌、潜在条件致病菌、炎症相关菌群等是否处于值得关注的水平。
为后续观察、干预和复测提供参照
如果一个人未来出现症状变化、接受抗生素治疗、长期腹泻或便秘、体重快速变化、慢病治疗、营养干预或粪菌相关治疗,基线数据可以帮助判断菌群变化的幅度和方向。
对于科研和临床随访而言,基线更是分析因果链条和干预效果的基础。
在商业场景中,忽视基线会带来明显问题
机构可能先通过报告制造异常,再推荐干预,然后用干预后某些指标变化证明产品有效。但如果没有真实干预前基线、没有对照、没有标准化采样和统计分析,这种“前后对比”很容易受到自然波动、饮食变化、检测误差和选择性展示影响。
科学的基线检测应当先于干预,并尽量独立于产品销售。
为什么后端干预前必须重视基线?
干预越强,越需要先看清原始状态
肠道菌群相关干预包括饮食调整、膳食纤维增加、益生菌补充、益生元补充、合生元、后生元、抗生素使用、药物治疗、运动和睡眠改善,甚至粪菌移植等。
这些干预方式的强度差异很大,潜在影响也不同。一般来说,干预越强,越需要在干预前获得可靠基线。否则,后续干预就像在没有地图的情况下改变一个复杂生态系统:既不知道哪里真正需要调整,也很难判断调整后是否真的变好了。
没有基线,容易把正常差异误判为异常
举例来说,一个人检测前长期高纤维饮食,短链脂肪酸产生菌丰富,菌群多样性较好,Akkermansia、Faecalibacterium、Roseburia 等相关菌群处于适宜范围。
但如果采用了不适配的人群参考值,或者用过于简单的评分体系判断其“菌群低分”“缺乏益生菌”,就可能引导其进行并不必要的补充。几个月后,即使检测指标发生变化,也很难判断这种变化是否真的有益;如果症状没有改善,还可能进一步造成误解甚至过度干预。
警惕“检测—焦虑—购买”的闭环
再如,一个人原本并无明显肠道疾病风险,只是因为看到“菌群年轻化”“提升免疫力”等广告接受检测。
若报告故意调高某些“有益菌”参考阈值,使多数人看起来不达标,再配套推荐产品,就容易形成“检测—焦虑—购买”的闭环。此时检测不是科学评估,而是销售脚本的一部分。
高强度干预尤其不能只凭单次商业检测决定
还有更需要谨慎的例子是粪菌移植。粪菌移植在复发性艰难梭菌感染等特定疾病中已有较明确证据,但在广泛大健康、减重、美容、抗衰、情绪改善等场景中仍需严格限定适应证和风险评估。
如果一个人原本菌群分值不错、没有明确临床适应证,却因为错误参考范围或夸大解读而接受粪菌移植,可能破坏自身已有土著菌群生态,引入不可预测的微生物和代谢风险。粪菌移植不是普通保健项目,更不能成为基于单次商业检测结果的轻率选择。
基线的作用,是为干预设置目标和边界
首次基线检测可以在这些场景中发挥“刹车”和“参照”作用。
它让个体和专业人员知道:
因此,基线检测不是为了让所有人都进入干预流程,而是为了让干预更有依据、更有边界,也更容易被客观评估。
编辑
肠道菌群不是越多越好,也不是某个明星菌越高越好
“好菌越多、坏菌越少”是一种过度简化
市场宣传中常见一种简单化表达:某种菌是“好菌”,越多越好;某种菌是“坏菌”,越少越好。这样的说法便于传播,却容易误导。
肠道菌群是生态系统,不是单一成分表。许多细菌的意义取决于菌株水平、宿主背景、整体生态位置和代谢环境。
“明星菌”也不能脱离整体生态判断
即便是被广泛关注的有益相关菌,也不意味着所有人都需要补充或越多越健康。
以 Akkermansia muciniphila 为例,它常被称为黏蛋白降解菌,与肠黏液层代谢、代谢健康等研究方向相关。
在一些研究中,Akkermansia 的相对丰度与代谢指标改善相关,因此成为商业宣传中的“明星菌”。但这并不代表每个人都需要人为提高它,更不代表它越高越好。
若一个人的 Akkermansia 已经处在较高水平,同时整体菌群多样性良好、肠道症状不明显、炎症相关指标无异常,盲目追求进一步提升并没有充分科学依据。更极端地说,如果只看某一项指标而忽视整体生态,可能对个体产生错误引导。
乳酸菌、双歧杆菌也不是人人都要长期补充
同样,乳酸菌、双歧杆菌等常被公众理解为绝对“好菌”。但成人肠道中双歧杆菌丰度受年龄、饮食、地域和个体差异影响很大。
某些乳酸菌产品也可能并不长期定植,更多是短期代谢或免疫调节作用。对于一个本身菌群结构较好的人,长期、重复、大剂量补充多个益生菌产品,不一定带来额外收益,反而可能造成检测解释混乱、症状波动或经济负担。
条件致病菌也不能简单理解为“检出就是有病”
许多潜在致病菌或机会致病菌可以低丰度存在于健康人群中。判断其意义需要结合丰度、毒力基因、宿主症状、炎症指标、免疫状态和临床背景。将“检出某菌”直接等同于“感染”或“需要治疗”,是不严谨的。
因此,首次基线检测的一个重要作用,是帮助个体认识自己的菌群是在整体生态中呈现怎样的状态,而不是被单一明星菌或单项异常牵着走。
报告解读应坚持科学、克制和个体化
肠道菌群报告的难点不在于列出菌名,而在于解释。解释过少,用户看不懂;解释过度,又容易造成误导。
科学解读应坚持三个原则:基于证据、结合背景、承认不确定性。
基于证据:不能把相关性直接说成诊断结论
基于证据,意味着不能把单篇研究、动物实验或体外实验直接转化为个人诊断。许多菌群与疾病之间是相关关系,不一定是因果关系。即使某菌在某疾病患者中平均升高,也不代表某个健康人该菌升高就会发病。
结合背景:同一个结果,在不同人身上意义不同
结合背景,意味着要询问或记录受检者的年龄、饮食、排便、近期药物、疾病史和干预史。
承认不确定性,意味着报告要说明检测边界
粪便菌群主要反映肠腔和脱落菌群,还有部分肠黏膜菌群;DNA 检测不能区分活菌和死菌;相对丰度受其他菌变化影响,不等同于绝对数量;一次检测不能反映长期趋势;菌群功能潜力不等同于实时功能表达。
合理管理建议
个体化并不等于无限定制产品,而是基于个人基线和背景提出合理建议。
对于大多数人,最基础、证据更稳健的建议仍然是:增加多样化植物性食物,保证足够膳食纤维,减少长期高油高糖高加工食品,规律作息,适量运动,避免不必要抗生素,出现持续症状时及时就医。
肠道菌群检测在大健康领域的合理定位
在大健康领域,肠道菌群检测最适合扮演三个角色:教育工具、风险提示工具、随访比较工具。
作为教育工具,它可以让人更直观地理解饮食、药物、生活方式与肠道生态的关系。很多人在看到自己膳食纤维相关菌群不足后,更容易接受增加植物性食物的建议。
作为风险提示工具,它可以发现一些值得关注的模式,例如多样性明显降低、机会致病菌显著升高、产丁酸菌群不足、蛋白发酵相关特征突出等。但这些提示需要结合临床和生活背景,不应直接转化为疾病诊断。
作为随访比较工具,它可以用于观察干预前后趋势。尤其当同一实验室、同一方法、相似采样条件下多次检测时,纵向比较往往比不同机构之间横向比较更有意义。
行业规范化需要哪些努力?
肠道菌群检测行业要健康发展,需要从多个层面提升规范性。
编辑
实验室层面
应建立标准化采样、运输、DNA 提取、建库测序、生信分析和报告审核流程,持续进行质控和能力验证。对于关键性能指标,如重复性、检出限、批间差、污染控制、注释准确性等,应有内部验证和记录。
数据库层面
应建设大规模、本土化、结构化、可追溯的人群数据库,并对不同年龄、地域、性别、饮食和健康状态进行分层。数据库建设除了追求样本数量外,还应重视元数据质量。
模型层面
应提高透明度和可验证性。健康评分、风险模型和推荐算法应避免黑箱化,至少应在报告或技术说明中解释基本逻辑、适用范围和局限性。
报告层面
应使用审慎语言,区分科研关联、健康参考和临床诊断。报告不应夸大,不应制造焦虑,不应将所有偏离都导向产品购买。
监管和行业共识层面
需要推动术语标准、质控标准、参考数据库建设规范、报告表达规范和商业宣传边界。肠道菌群检测的发展前景不应建立在短期销售上,而应建立在科学可信和长期复测价值上。
肠道菌群检测的价值,既不宜被过度放大,也不应被简单忽视。它不能替代临床诊断,也不能仅凭一次检测就判断一个人的整体健康状况,更不应成为商业干预的唯一依据。不过,如果建立在规范实验室、严格质量控制、较大规模本土数据库以及专业解读的基础上,它仍然可以为个体了解自身微生态状况提供一定参考。
首次基线检测的意义,正在于记录个体在干预前相对原始的微生态状态。无论是后续的饮食调整、药物使用、益生菌补充,还是疾病治疗和健康管理,都需要一个可比较的起点。没有基线,很多个体化建议就缺少参照;没有客观数据库和质量体系,报告中的分数也容易失去实际意义;如果缺少科学边界,检测还可能在无形中增加不必要的健康焦虑。
因此,真正有价值的肠道菌群检测,更应该:
当行业更加重视科学依据、质量控制和长期随访,肠道菌群检测才有可能在大健康和精准健康管理中发挥更稳健的作用。对个体而言,报告上的某个分数并不是最重要的,真正值得保留和关注的,是基于真实基线建立起来的、长期可比较的微生态参考。
新一代肠道菌群检测将不止着眼于肠道菌群的构成和变化,而是和其他组学数据一起绘制全面的人体健康数字画像,借助海量的样本和多维度的高通量数据来揭示纷繁复杂的健康状况。
通过将肠道菌群和粪便代谢组、血浆代谢组、蛋白组、血液检测、临床记录和生活问卷等这些不同维度的数据在隐空间进行对齐,彻底释放肠道菌群中蕴含的丰富健康信息,也将让我们更加了解肠道菌群的真实边界。
也许肠道菌群能告诉我们的比我们自己了解的要多得多,只是这一切都要用真实可靠的海量数据来构建。谷禾正在构建庞大的队列数据集,推动肠道菌群的研究和应用向全新的领域前进,迎来属于肠道菌群的chatGPT时刻。
谷禾健康
人工智能(AI)几乎进入了所有行业,代码秒生成、数据处理效率翻倍,在几秒钟内完成过去需要几小时甚至几天才能完成的信息处理工作。那么,这股AI浪潮会重塑生命科学与医学吗?
放在微生物研究领域,答案是肯定的。更值得讨论的是, AI 正在以什么方式进入微生态研究,又会把这个行业推向哪里?
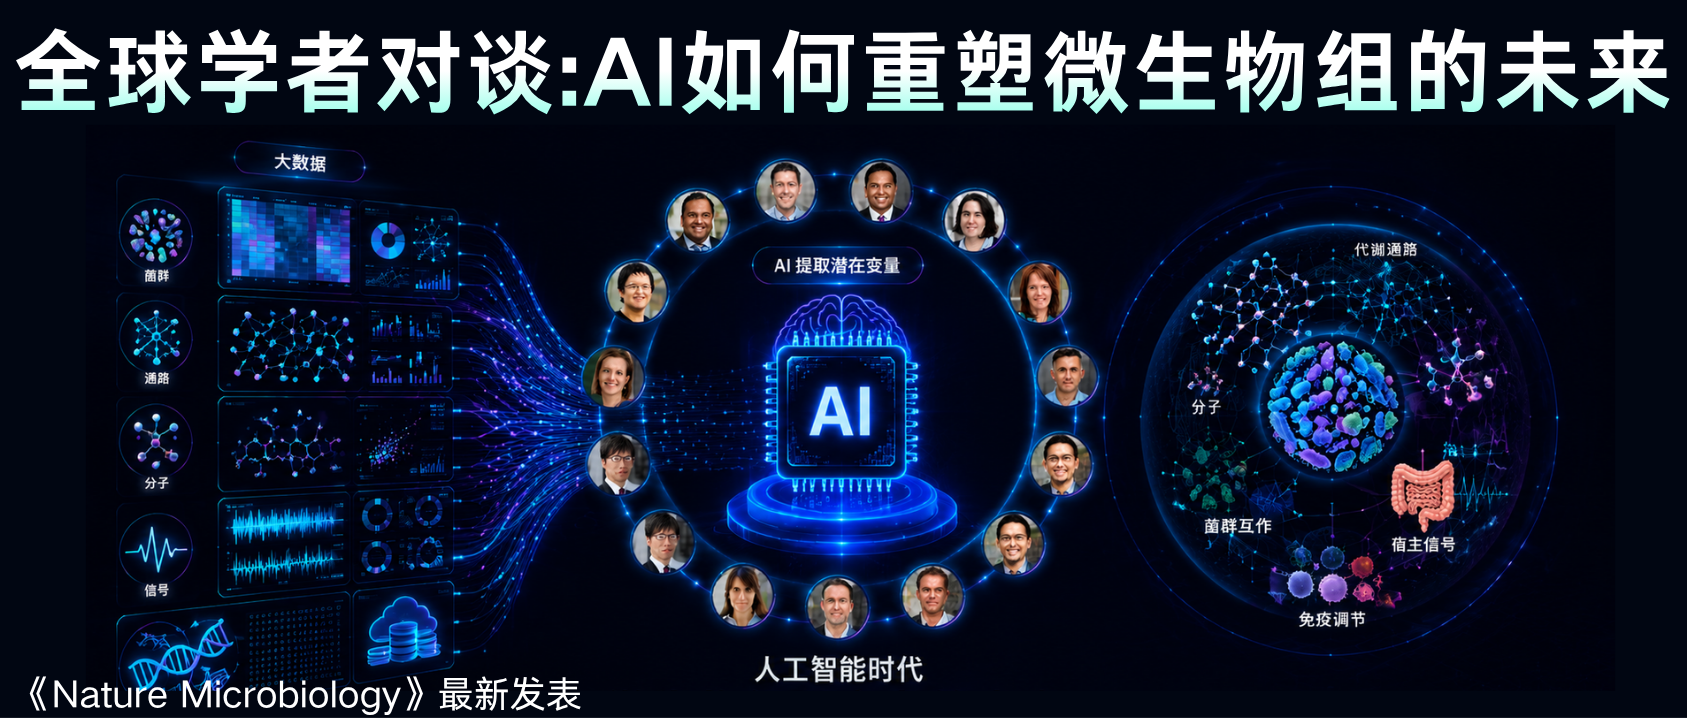
近日,《Nature Microbiology》邀请多位全球微生物组领域研究者,讨论 AI 对微生物组研究的影响。
这些科学家的观点并不单一。他们既看到了 AI 在复杂数据分析、多组学整合、临床变量提取、代谢物发现、疾病预测等方面的巨大潜力,也极具前瞻性地强调:AI 不是魔法,它不能绕过数据质量、实验验证和科学判断。
这篇讨论很有价值,它没有把 AI 描述成一个万能答案,也没有把 AI 看成科研的威胁。AI 正在成为微生态研究的一种新基础设施:它帮助人类更快地看见复杂数据中的线索,帮助科学家提出更有价值的问题,也帮助科研、临床、大健康和产业应用之间建立新的连接。
而在这背后,一个更加清晰的行业趋势正在出现:AI 能让微生态研究跑得更快;而一场关于数据与真实世界场景的终极较量,才刚刚开始。
菌群研究,本质上是在研究一个高度复杂的生命生态系统。菌群之间会相互竞争、协作,也会影响代谢产物、免疫反应、肠道屏障、炎症水平,甚至与药物反应、饮食结构和疾病进展发生联系。
以色列魏茨曼科学研究所的Eran Elinav教授提到,微生物组领域可以从 AI 革命中受益很多。
因为这个领域面对的正是复杂的微生物群、跨物种相互作用,以及生物活性代谢物与其微生物来源之间的关系。
也就是说,AI 最适合介入的地方,正是人类很难直接看清的复杂关系。
过去,研究者经常是先观察现象,再逐步寻找解释;而现在,AI 可以帮助科学家在海量数据中提前发现可能被忽视的线索,让研究从人工寻找线索进入机器辅助提出假设的阶段。
在微生态研究中,数据从来不缺。
宏基因组、代谢组、蛋白组、转录组、免疫指标、临床变量、电子病历、饮食记录、随访数据……这些数据越积越多,那么怎么样从大量信息中找到重要的部分?
从海量候选中,找到最值得验证的信号
美国匹兹堡大学的 Reinhard Hinterleitner 研究微生物代谢物如何影响免疫反应。
他提到,现在很多时候最难的并不是收集数据,而是判断哪些代谢物最可能具有生物活性,并且与疾病真正相关。
在过去,耗费无数科研人员大把青春的,往往不是实验本身,而是先观察到现象,再在长长的候选名单里“撞大运”去寻找解释… 在生命科学里,重要的是找到哪些差异值得继续深入研究下去。如果 AI 能够帮助科学家更快完成筛选,科研效率就会发生实质性变化。
这正是 AI 能降维打击的地方。
AI 可以从很长的候选名单中,帮助研究者优先筛选更值得验证的代谢物。它不是直接替科学家完成结论,而是让研究者更快把注意力集中到最有可能产生价值的方向上。
AI正在扩大微生态研究的搜索半径
Karen P. Scott 教授也提到,随着 DNA 测序数据大量产生,分析工作耗时巨大,很多数据甚至还没有被充分挖掘。
机器学习工具可以帮助研究者更高效地从巨大数据集中发现新的抗菌蛋白和细菌素。
未来,研究者不一定只依赖序列同源性,而可以结合蛋白质三维结构和靶点相互作用,寻找具有潜在活性的序列。
这说明 AI 在微生态领域的应用,不仅停留在分析菌群结构,还可能深入到新型抗菌物质发现、微生物功能预测和药物开发的早期阶段。
编辑
从这个角度看,AI 正在扩大微生态研究的搜索半径。过去我们只能在有限区域内寻找答案;现在,AI 可以帮助人类把更多被忽略的角落纳入视野。
AI 的本质,不是消灭科学家的工作,而是把科学家从科研高级打字员中解救出来,当工具把寻找线索的速度拉到极致时,他们可以把精力留给科学直觉。
一种菌的变化,可能只是结果,不一定是原因;一个代谢物的升高,可能与疾病相关,但不一定就是治疗靶点;同一种菌群结构,在不同饮食、不同年龄、不同疾病背景下,也可能意味着完全不同的事情。
这也是为什么 AI 的价值不仅是算得更快,而是整合得更多。
编辑
比利时根特大学Gerard Bryan Gonzales 提到,AI 可以帮助科学家从大数据中提取潜在变量,在降低维度的同时保留生物学意义。这些潜在变量可能是共同出现的菌群组合,也可能是通路、分子特征或更复杂的生物信号。
从单个指标,走向多组学网络
这句话背后的意义是:AI 可以帮助研究者不再孤立地看某一个菌、某一个指标,而是把微生态系统看成一个整体。
编辑
比利时安特卫普大学的 Sarah Lebeer 也提到,AI 正在帮助微生物组研究整合不断扩大的多组学数据,并把它们组织成更连贯的生物网络。
虽然她重点研究的是阴道微生物组,并提醒不同生态位之间不能简单套用模型,但她的观点同样适用于整个微生态领域:AI 的价值不只是发现差异,而是帮助我们建立网络化、系统化的理解。
未来,研究者更需要理解网络:菌群如何影响代谢物,代谢物如何作用于宿主细胞,宿主免疫状态又如何反过来影响微生态结构。
从看见差异到理解关系,这是微生态研究走向成熟的重要一步。
从静态结构,走向动态演化
编辑
葡萄牙古尔本基安分子医学研究所的 Isabel Gordo 则进一步提醒我们,肠道菌群并不是静止不变的结构。时间序列宏基因组测序已经显示,肠道中的菌株会在宿主体内持续变化,甚至发生快速演化。
是什么驱动了这种进化,以及肠道细菌中特定遗传改变在多大程度上可以作为某种疾病背景的生物标志物,都是具有挑战性的开放问题。
AI 模型可用于挖掘并整合过去一个世纪在微生物遗传学中积累的知识,以及过去十年的微生物组数据,从而帮助回答这一挑战。
这种转变会影响整个行业。
编辑
如果说基础研究关注的是机制,那么临床和真实世界更关注的是:这些研究发现能否在人群中得到验证?
在这方面,AI 的作用同样明显。
当菌群数据遇见电子病历
编辑
梅奥诊所的 Purna Kashyap 教授提到,AI 已经改变了他们从电子健康记录中提取临床结局和复杂临床变量的方式,尤其是在大规模人群数据中。这有助于更好地识别与疾病和结局相关的微生物信号,也可以帮助寻找可能被微生物影响的宿主通路。
这意味着,微生态研究正在从实验室数据走向真实世界数据。
过去,科研可能主要围绕样本和测序结果展开;现在,如果菌群数据能与电子病历、临床指标、生活方式、饮食、用药、随访结局结合,就可能为疾病风险评估、治疗反应预测和个体化健康管理提供新的参考维度。
从算法预测到生物学验证
编辑
日本大阪大学的 Kiyoshi Takeda 教授也提到,微生物与宿主之间的相互作用发生在一个高度复杂的系统中。
AI 可以通过患者和健康个体之间的比较分析,帮助识别疾病相关的肠道微生物、微生物来源的代谢物,以及这些代谢物可能作用的宿主细胞或受体。随后,研究者可以通过小鼠模型等生物学研究验证这些预测,并推动其向人类疾病应用转化。
AI 先帮助发现可能的关联;
实验进一步验证机制;
临床研究再判断它能否用于人群。
AI 让医学和微生态研究之间多了一座桥。
编辑
爱尔兰科克大学的 Niall Patrick Hyland 关注宿主-微生物界面,尤其是微生物组如何影响肠道生理。他认为,随着实验数据越来越复杂,AI 可以更客观地识别生理读数中的模式,减少人为偏差,发现原本难以辨认的信号。
同时,AI 在模拟微生物组与药物、外源化合物相互作用方面也有潜力,有助于理解个体反应,并推动微生态治疗的发展。
这一点也很重要。
这些问题,都可能与微生态有关。AI 的作用,就是帮助我们把这些复杂因素重新组织起来。
AI 对微生态研究的影响,并不只体现在数据分析上。它也在改变科研工作的组织方式。
AI正在进入科研的应用流程
编辑
哈佛医学院的 Marco Jost 提到,机器学习早已是微生物组研究中的常用工具,尤其是在大型组学数据中提取生物信号。
但近几年大语言模型带来的变化,更多发生在科研行为本身:它们可以自动化一些繁琐的实验室任务,生成代码初稿,帮助研究者快速了解陌生领域。
编辑
杜克大学的 Lawrence A. David 也提到,AI 可以放大科研努力。
在他的实验室中,AI 不仅用于管理复杂项目流程,还能把成千上万条食品成分清单转换成用于基因组数据库的精确拉丁物种名称。过去这些任务可能需要研究者花费大量时间,现在可以大幅加速。
这些例子说明,AI 正在进入科研工作的底层流程。
它可以整理资料、清洗数据、管理流程、辅助编程、提取元数据、识别错误、汇总文献。看似都是辅助工作,但长期来看,它会改变科研团队的时间分配。
科学家的价值重心正在转移
未来,AI 承担更多基础工作后,人类科学家的价值会更加集中在提出问题、判断方向、设计实验和解释结果上。
编辑
Lawrence A. David 因此提出一个值得思考的问题:既然 AI 越来越擅长写作、编程和统计分析,我们应该如何重新训练未来科学家?
他的答案是,未来更应该重视科学素养,包括:
这句话对所有行业都有启发。
在万物皆可被大模型自动化的时代,当工具越来越强,完成某个技术动作不再是门槛,重要的是是否知道应该把工具用在哪里;难的是提出连 AI 都没想到的问题;当 AI 给你一个漂亮答案时,你依然有底气去质疑它是否靠谱。
AI 时代,科学家的门槛并没有降低,只是门槛换了位置。
谈 AI 的价值,并不意味着忽略它的边界。相反,越是步入生命科学和健康领域的深水区,越需要清楚地知道 AI 能做什么,不能做什么。
Eran Elinav 教授提醒,AI 的表现取决于输入数据的质量。它最多可以生成更有信息量的相关性、关联和预测,但理解因果关系和分子机制,仍然需要严谨的实验验证。
这是微生态研究中非常核心的一点。
相关性,不等于因果性
某种菌和某种疾病同时出现,不代表这种菌就是病因。某个代谢物和某种健康状态相关,也不代表它就是干预靶点。AI 可以告诉我们,这里可能有信号,但不能自动证明这就是原因。
Purna Kashyap 也提醒,微生物组数据高度稀疏、维度高、非常依赖具体背景。如果再叠加批次效应、研究设计差异和功能注释不完整,AI 模型可能会过拟合,也可能识别出没有生物因果意义的相关性。
模型越复杂,不一定越可靠
编辑
Sean M. Gibbons 的观点更加直接。他认为,对于许多只有几百到几千个样本的生物医学数据集,训练新的深度学习模型在统计上并不总是可行。很多时候,参数更少的传统机器学习模型反而更合适。
他还提醒,不能盲目相信 AI 热潮,而应该用人的判断力谨慎地使用 AI。
AI 能提高效率,但不能替代证据等级。
AI 能发现模式,但不能自动完成因果解释。
AI 能生成结论的雏形,但不能承担科学判断的责任。
在微生态领域,这一点尤其重要。
越复杂的领域,越需要强大的工具;也越需要清醒的边界。
尽管科学家们不断提醒 AI 的边界,但他们对 AI 推动微生态研究的未来仍然保持积极态度。
疾病关联 → 治疗反应预测
编辑
希腊亚历山大·弗莱明生物医学科学研究中心的 Vasiliki Koliaraki 提到,AI 正在改变我们研究肠道微生物组的方式。
基于宏基因组数据训练的机器学习模型,已经可以识别与炎症性肠病诊断和治疗反应相关的微生物模式。
未来,这些能力有望进一步帮助临床前研究,改进我们对微生物组—宿主相互作用的建模,预测哪些微生物可能推动肠道疾病,并设计更有针对性的干预策略。
多组学模式 → 机制理解
编辑
密歇根州立大学的Robert A. Quinn 则从代谢组学角度谈到,他们实验室长期使用 AI 工具分析复杂多组学数据,如今更依赖 AI 解释大规模代谢组数据,发现人工难以识别的微生物化学模式。
他还提到,深度学习方法正在被用于预测多组学数据中的生物关系,并且在识别模式方面表现出优于传统统计分析的潜力。
这些观点共同指向一个趋势:微生态研究正在从描述走向预测,再进一步走向机制理解。
构建“人体-微生物”复合模型
编辑
来自阿根廷立陶宛国立大学的Gabriel Vinderola 提到,他们参与的 Global Microbiome Conservancy 汇集了来自非洲、亚洲、南美和欧洲二十多个国家研究者,关注全球人类微生物组,并加强历史上代表性不足人群的研究能力。
AI 和机器学习工具可以整合宏基因组、分离菌株基因组、代谢组、免疫标志物和临床表型,同时帮助拆解生活方式、饮食、地理和宿主遗传等因素之间的相关驱动关系。
他的判断很有代表性:微生态研究正在从以描述为主,转向预测性、机制性,甚至生成式的人体metaorganism模型。
注:这里的metaorganism,可以理解为人与体内微生物共同构成的复合生命系统。
当 AI 越来越强,很多人会自然把注意力放在算法、模型和算力上。
在微生态领域,稀缺的东西可能还不只是算法
编辑
Paul W. O’Toole 教授提到,他们已经多年使用监督式机器学习,识别基因组或宏基因组中能预测表型和宿主特征的关键特征。
他们还使用自然语言处理进行元数据整理,筛选超过 12000 条生物样本记录并标记错误;同时,也在利用粪便宏基因组数据进行结直肠癌检测,并通过隐私保护的联邦 AI,让患者元数据不离开诊所。
这说明,AI 要进入医学和健康场景,数据治理、隐私保护、样本质量、元数据标准化同样重要。
没有这些基础,AI 很难稳定发挥价值。
Sean M. Gibbons 也提醒,大模型并不适合所有场景。对于许多生物医学数据,样本量、参数量和统计可行性之间需要匹配。
模型越复杂,不一定越好;在数据不足或结构不清晰的情况下,复杂模型反而可能带来更大的不确定性。
编辑
微生态行业的关键能力正在重新排序
这给整个行业一个非常现实的提醒:
AI 不是把少量、混乱、低质量的数据变成高质量科学的机器。它只是把数据中的信号和问题,一起放大。如果喂给它的是贫瘠与混乱,它撬动的绝非科学的真相,而是一场更大规模的统计学灾难。
因此,在 AI 时代,微生态行业的关键能力会重新排序。
第一,持续产生高质量数据。
第二,建立标准化流程。
第三,连接真实世界场景。
第四,把菌群数据与饮食、临床、代谢、免疫、生活方式、长期随访结合。
第五,把 AI 发现的模式转化为专业、审慎、可验证的解释。
这些是微生态行业真正的底层能力。
回到产业层面,肠道菌群检测的意义也需要被重新理解,检测是微生态数据体系的重要入口。
AI再聪明也是吃喂进去的数据
数据对于科研、大健康、临床研究、营养干预、产品开发、疾病风险管理和个体化健康服务,都可能具有长期价值。
编辑
数据连接真实场景,产生长期价值
当然,数据的价值不只是多。也需要的是长期、真实、标准化、可解释,并且能够与具体健康场景连接。
AI 会提高微生态研究和应用的效率,但真正支撑行业长期发展的,仍然是数据积累、标准体系、场景转化、科学验证等。
AI正在推动微生物学进入一个发现更快、理解更深的阶段,也让大量沉睡在数据中的线索重新显现,推动了整个研究视角的升级。
菌群检测行业的长期价值,建立在可信的数据之上。随着检测标准、数据体系和验证路径日益完善,当高质量数据持续沉淀,微生态领域将形成更清晰的证据链,这也为产业上下游协作提供更扎实的基础。
谷禾也将继续围绕这一入口,通过长期、真实、标准的动态数据积累,将 AI 的算力与高质量的真实世界数据深度耦合,推动微生态研究成果更稳健地走向科研转化、产业协同和大众健康应用。
主要参考文献:
Sharma, A. Voices of microbiome researchers in an artificial intelligence era. Nat Microbiol (2026). doi.org/10.1038/s41564-026-02359-7
谷禾健康
“从来没吃过四环素类抗生素,为什么肠道宏基因组报告里会检出四环素耐药基因?”
很多人第一次看到这类结果时,都会有类似的困惑。“耐药风险”“耐药基因”“抗生素耐药相关通路”“ARGs”等这些是什么意思?
如果报告里还有“β-内酰胺类耐药基因”、“大环内酯类耐药基因”、“耐药风险中等”、“耐药相关基因丰度升高”,就更担心了。
这些担心可以理解,但从专业检测角度看,耐药基因检出并不等于感染,不等于临床耐药,也不等于一定吃过抗生素。它更多时候提示的是:在样本中的微生物群落里,存在某些与抗生素耐药相关的遗传信息。
这个信号有参考价值,但它还不是最终结论。它到底意味着什么,要继续看:
本文会用尽量通俗的语言,系统解释16S测序和宏基因组测序报告中的耐药风险、耐药基因、临床药敏之间到底是什么关系,以及拿到报告后应该如何看待。
报告里的“耐药风险”“耐药基因”,和临床上说的耐药,其实并不是一回事。首先我们来了解一下这些概念:
★ 耐药风险:是报告给出的提示
它提醒样本里有一些和耐药相关的信号,但还需要结合样本来源、病原体和临床情况判断。
★ 耐药基因:是DNA层面的线索
它说明样本中存在某些与抗生素耐受、降解、外排或修饰相关的遗传信息。但耐药基因存在,不代表一定表达,也不代表正在感染。
★ 表型耐药:是药敏试验看到的实际表现
也就是把活菌培养出来后,看它对某种抗生素是敏感、中介,还是耐药。临床常见的S、I、R和MIC,主要来自这个层面。
★ 临床耐药:是患者真实治疗中的结果
它不仅和细菌有关,还和感染部位、药物浓度、免疫状态、感染灶处理、是否混合感染等因素有关。
简单来说,这几个词的关系可以理解为:
-耐药风险,是提醒;
-耐药基因,是线索;
-表型耐药,是实验室证据;
-临床耐药,是最终综合判断(一般是临床医生下结论)。
编辑
前面我们了解了,耐药风险、耐药基因等大概是什么意思,这一章节,我们来看不同技术报告里的“耐药”有什么区别。
常见的检测包括:16S rRNA、宏基因组mNGS、靶向tNGS。这些技术的检测目标、覆盖范围、敏感性、成本和适用场景不同。
16S rRNA:耐药风险多为间接推断
16S rRNA测序常用于肠道菌群、口腔菌群、阴道菌群、皮肤菌群等微生态评估。
16S 看的是菌群结构,不是完整耐药基因
它主要是在讲:
需要强调的是:常规16S测序并不直接检测完整耐药基因。
因为16S测的是一个相对保守的标记基因,不是完整基因组。它可以帮助识别细菌组成和丰度,但不能像宏基因组那样直接读取大量功能基因。
编辑
<来源:谷禾健康肠道菌群检测数据库>
因此,16S报告里的“耐药风险”,多数情况下是基于样本中的细菌组成,再结合数据库中这些菌属或菌种常见携带耐药基因的背景,间接评估样本携带耐药基因的可能性和耐药风险高或者低。
换句话说,16S更适合告诉我们:菌群生态里有没有某些风险信号。
它不适合直接回答:这个抗生素到底能不能用。所以,如果16S报告写着“β-内酰胺类耐药风险升高”,更合理的理解是:样本菌群中存在某些与这类耐药背景相关的生态特征,需要结合具体情况看,而不是直接得出“头孢一定无效”。
适用场景
16S里的耐药风险,更适合用于菌群生态观察、健康人群菌群检测、长期趋势评估、阴道/肠道微生态研究、大规模队列或环境耐药组普查等场景,不适合作为临床感染用药的直接依据,只能提供病原菌耐药的风险提示。
编辑
宏基因组:可以发现耐药基因,但不等于药敏
宏基因组测序,也就是mNGS,通常是对样本中的总DNA进行测序。
全面探索病原体与耐药线索
它的优势是覆盖范围广,可以无偏倚地全面检测样本中所有微生物的耐药基因,理论上能发现所有已知耐药机制。
宏基因组可以把样本中的DNA片段与耐药基因数据库进行比对。如果某些序列与已知耐药基因高度相似,就可能被报告为相应耐药基因。
编辑
比如:
适用场景
相比16S,宏基因组对耐药基因的检测更直接,也更适合病因未明的复杂感染、免疫抑制患者感染、经验治疗失败、混合感染等需要全面探索的场景。
它像是在一个复杂样本里尽可能广泛地翻找线索,帮助临床发现罕见或意想不到的病原体和耐药机制。
宏基因组也有限制
它受整体测序深度影响,对于低丰度病原体中的特定耐药突变,敏感性往往不足,且数据量大、分析周期长、成本相对较高。
编辑
tNGS:聚焦重点靶标,敏感性更高
靶向高通量测序,也就是tNGS,是针对临床上最关注的高优先级病原菌和重要耐药基因,设计特异性引物或探针,只检测目标区域。
它不像宏基因组那样尽可能检测样本中所有微生物,而是更像带着清单去找重点目标。
这种设计有一个明显好处,测序深度集中在目标区域,所以敏感性显著提高,能够检测到低丰度病原体携带的耐药基因和耐药突变,结果也更容易解释,往往能直接对应到具体药物类别。
适用场景
非常适合已经怀疑特定病原体感染、需要快速获得精准耐药信息指导临床用药的场景,是平衡检测范围、敏感性和成本的务实选择。
编辑
总的来说,
这是很多人最困惑的地方。
“我明明没怎么吃抗生素,为什么报告里会有耐药基因?” 很多人以为耐药基因只有在医院、重症感染或长期抗生素使用者身上才会出现,那么耐药基因的出现,是不是已经很严重了?
先不用这样理解。
抗生素使用确实会促进耐药菌和耐药基因的富集,但它不是唯一原因。原因很简单:
耐药基因广泛存在于自然界和人体微生态中
抗生素并不是人类发明后才出现的。许多抗生素本来就来源于微生物,比如青霉素来自真菌,链霉素来自放线菌。微生物之间在自然界中长期竞争,产生抗菌物质,也进化出保护自己的机制。因此,耐药基因在土壤、水体、动物肠道、人类肠道中本来就可能存在。
人类大规模使用抗生素以后,确实加速了耐药基因的筛选和传播,但这不等于每一次耐药基因检出都能追溯到某个人近期吃过抗生素。
一个典型例子:四环素耐药基因
四环素类抗生素曾在畜禽、水产养殖中被广泛使用。长期选择压力下,动物肠道、粪便、养殖废水、养殖场土壤中,都可能富集四环素耐药菌或四环素耐药基因,比如常见的 tet类基因。
这些基因可能随着动物粪便进入土壤或水体,也可能通过养殖废水、农田粪肥、蔬菜表面、水产品和肉类加工处理等环节,进入更大的环境循环。人再通过食物、手部接触或环境接触,摄入少量相关菌或DNA片段。
编辑
所以,一个人的肠道宏基因组里检出 tet类四环素耐药基因,并不一定说明他近期吃过四环素。它也可能反映食物链、环境暴露或社区微生物交换。
日常接触,也可能留下低丰度信号
生活中类似的场景也不少。比如:
这些情况通常不意味着感染,也不意味着一定会耐药。但从检测角度看,它们可能让样本中出现一些低丰度的耐药基因信号。
质粒传播:细菌之间的移动U盘
还有一些耐药基因可以通过质粒等可移动遗传元件在细菌之间传播。
可以把质粒理解为细菌之间传递的小型U盘:一个细菌把抵抗某类抗生素的说明书传给另一个细菌,后者就可能获得新的耐药能力。
编辑
不过,检测到耐药基因,并不代表正在发生质粒转移,也不代表它已经转移到了致病菌身上。
报告通常只能提示存在相关基因或相关序列,是否具备转移能力、是否在病原菌中、是否表达,还需要更深入的分析或实验验证。
所以,没吃抗生素却检出耐药基因,并不奇怪,
耐药基因的来源可能很多,有些只是微生态里的背景信号,不能只用“有没有吃过抗生素”来解释。
但背景信号不等于没有意义。需要继续判断的是:这个基因只是背景信号,还是已经和某个明确病原体、某次感染、某类用药产生关系?
这就进入了下一个问题。
耐药基因不是一检出就自动决定能不能用药。它要影响用药判断,中间至少要看几层关系。
第一层:检出的是DNA,不一定是活菌
很多测序检测,尤其是宏基因组测序,看到的是样本里的DNA。DNA可能来自活菌,也可能来自死菌、破碎菌体,甚至是游离DNA片段。
比如感染治疗后,病原体可能已经被部分清除,但样本里仍然残留一些微生物DNA。这个时候,检测结果可能还能看到相关基因信号,但它不一定代表样本里还有大量活的耐药菌。
第二层:它是不是在真正的病原体身上?
这一步更关键。
同一个耐药基因,如果在普通共生菌身上,和在明确致病菌身上,意义完全不同。
比如,粪便样本里检出某个耐药基因,可能来自肠道里的普通共生菌;但如果在血液、脑脊液、肺泡灌洗液等感染相关样本中,同时检出明确病原体和关键耐药基因,临床意义就会明显增加。
问题在于,很多测序结果不一定能准确告诉你:
这个耐药基因到底属于哪个菌?
尤其是宏基因组短读长测序,样本DNA会被打碎成很多片段。报告可能识别出某个片段像耐药基因,也识别出样本里有哪些菌,但未必能百分之百确认这个基因就长在某个具体病原体身上。
第三层:基因存在,不代表正在发挥作用
耐药基因要真正产生耐药效果,通常需要被表达出来。
也就是说,DNA层面有这个基因,只说明细菌可能有这套说明书,但这套说明书有没有被读取,相关蛋白有没有产生,产生的量够不够影响药物作用,还要另说。
这也是为什么单纯看到一个耐药基因,不能直接等同于药敏试验里的“R”。
所以这里要分清,基因存在,是潜在能力;真正耐药,要看它有没有形成实际表现。
第四层:它和具体药物有没有明确对应关系?
有些耐药基因和药物类别的关系比较明确,比如某些碳青霉烯酶基因、mecA、vanA、vanB、mcr等,临床上会更重视。
但也有一些耐药基因属于较大的基因家族,或者只提示某一类耐药机制,并不能简单对应到某一个药一定无效。
比如,同样是β-内酰胺类耐药相关基因,不同基因、不同亚型、不同表达水平,对青霉素类、头孢类、碳青霉烯类药物的影响可能不同。
同样是四环素类耐药基因,不同tet基因对应的机制也可能不同,有的是外排泵,有的是核糖体保护蛋白。
所以,要去看它提示的是一个大类风险,还是足以影响具体药物选择的关键机制。
第五层:数据库和算法会影响检出的边界
耐药基因的识别,通常需要把测序片段和数据库进行比对。
但不同数据库收录的基因不同,命名方式不同,更新速度不同。不同实验室使用的分析流程、相似度阈值、覆盖度标准、报告规则也可能不同。
如果一个基因只匹配了很短一段,或者相似度不高,可信度就要谨慎。如果覆盖度高、相似度高、reads数也足够多,结果的可信度才会更强。
从背景信号,到用药线索,需要证据链
把这些层次串起来,就会发现:
所以,看到耐药基因后,不应该立刻下结论说这个药一定没用。更合适的理解是:报告提示样本里出现了一个耐药相关线索,接下来要判断它是否来自活菌、是否属于真正的病原体、是否是关键耐药机制等。
也就是说,从背景信号到影响用药,中间还差一整套证据链。下一步,真正需要看的就是:临床上到底怎么把这些证据串起来。
如果患者有明确感染,医生判断耐药性通常会综合病原体、样本来源、培养药敏、感染部位、患者状态和治疗反应。
首先看检出的病原体是否符合临床表现
判断病原体意义,要结合患者症状、感染部位、样本类型、采样质量、炎症指标、影像学表现、是否来自无菌部位、是否重复检出、菌量或序列丰度、既往病史和免疫状态。
其次,培养和药敏仍然重要
传统培养虽然有局限,比如生长慢、厌氧菌难培养、使用抗生素后阳性率下降,但它能获得活菌,是药敏试验的基础。
对于许多感染来说,培养阳性并结合药敏,仍然是指导抗感染治疗的核心依据。
药敏试验通常报告为S、I、R。
MIC是最低抑菌浓度,也就是抑制细菌可见生长所需的最低药物浓度。
但MIC也不是孤立指标。它要结合药物在人体内的药代动力学和药效学,也就是药物能否在感染部位达到足够浓度。
比如,有些药物在尿液中浓度很高,对尿路感染可能有效;但同样的药物在肺组织、脑脊液或脓肿内浓度不足,就未必适用。
第三,关键耐药基因需重视,但也要看归属
不同耐药基因的临床意义不同。有些基因具有较强提示意义,比如:
这些基因值得重视,但仍然要看它是否与对应病原体关联,是否有足够覆盖度和丰度,是否与临床培养药敏一致。
一个粪便样本里的低丰度tet基因,和一个血流感染样本中高可信度blaNDM基因,临床意义完全不同。
最后,还要看感染部位和药物可达性
临床用药不是只看敏感或耐药。
所以,耐药基因只是抗感染决策中的一个维度,不能单独决定治疗方案。
报告里的“高风险”,通常不是临床诊断等级,也不等于疾病严重程度。它更多是在说:根据这份样本和这套检测方法,报告发现了一些相对更值得注意的耐药相关信号。
那这个“高”,到底可能高在哪里?
可能是reads数比较高
报告会写 reads数。reads数可以简单理解为:有多少测序片段支持这个菌或这个基因的存在。
一般来说,reads数越多,说明检测到的证据越多;但它不能单独决定严重程度。因为reads数会受到很多因素影响,比如样本总DNA量、宿主DNA比例、测序深度、基因长度、样本保存质量等。
临床解读时,低reads结果尤其要谨慎。
编辑
<来源:谷禾健康肠道菌群检测数据库>
可能是占比更高
相对丰度表示某个菌或某个基因,在样本可识别微生物或基因中的占比。
它适合看结构变化,但不能直接等同于绝对数量。
比如,一个耐药基因的相对丰度升高,可能是它本身增加了;也可能是其他菌减少了,导致它的比例看起来变高。
所以,相对丰度高,说明它在这个样本里的占比更突出;但不等于体内一定有大量耐药菌。
在谷禾的检测报告中,会加入“在标本中浓度”、“信号强度”等指标,提供拷贝数、copies/mL、copies/g等。对判断病原负荷和变化趋势更有帮助。
编辑
<来源:谷禾健康肠道菌群检测数据库>
可能是比对结果更可靠
有些报告里还可能出现相似度、覆盖度、测序深度这类指标。
这些指标主要用来判断:测序片段和数据库里的目标基因,匹配得像不像、覆盖得全不全、证据够不够扎实。
如果一个耐药基因只匹配到很短一段,或者相似度不高,就要谨慎解读。
如果相似度高、覆盖度高、reads数也足够多,说明这个检出结果更可靠。
既然耐药基因不能直接等于感染,也不能直接等于药敏,那检出来到底有什么意义?
反复用药效果不好时,它能提醒尽早换思路
临床上有些患者,尤其是老年人、基础病多、反复感染的人,可能已经经历过好几轮抗生素治疗。
编辑
一开始是经验用药,效果不好换一种,还是不好,才进一步做培养、药敏,或者更深入的病原检测。
这个过程中,患者可能已经经历了较长时间的感染、反复发热、炎症指标不降,甚至住院时间延长。
如果前期就能看到一些耐药相关线索,至少可以提醒:这个人可能存在较高的耐药背景,常规经验用药未必合适,必要时应该尽早做培养和药敏,或者结合mNGS、tNGS等检测进一步判断。
某患者A,因反复腹泻、腹痛,使用抗生素后疗效不佳。
编辑
<来源:谷禾健康肠道菌群检测数据库>
谷禾宏基因组菌群检测报告提示,核心共生菌 Faecalibacterium prausnitzii 中检出 tet(W),提示四环素类耐药基因可能已进入稳定共生菌群。
肠道优势菌Bacteroides中检出 cepA、cblA。这类菌本就是肠道常驻菌,如果携带β-内酰胺类相关耐药基因,提示患者肠道厌氧菌群可能存在较稳定的β-内酰胺耐药背景;在后续腹腔、肠源性或混合感染风险评估中,经验性使用青霉素类、部分头孢类药物时就应更加谨慎,而不是简单继续轮换抗生素。
此外,Enterococcus 中检出 vanD,提示需关注糖肽类耐药风险;E. coli 中检出 arsC,提示菌群还可能存在环境金属抗性压力。该报告帮助医生从继续试药转向结合感染部位、病原学、药敏结果和菌群修复的综合管理。
在重症和疑难感染中,它能让判断更有方向
普通感染中,医生有时可以根据经验治疗,再根据疗效调整。
但在重症感染、免疫抑制患者感染、血流感染、重症肺炎、脑膜炎等场景里,试错成本会明显升高。
若能更早获得病原体和耐药相关信息,就可能帮助医生更快判断:哪些抗生素可能覆盖不足,哪些耐药机制需要警惕,是否需要联合用药,是否需要尽快补做培养和药敏,或者调整诊疗方向。
在健康管理中,它更偏向预防性参考
有些报告不是为了诊断一次急性感染,而是用于健康管理或微生态评估。
这类报告里的耐药风险,更多是预防为主。它可以提供一个背景信息:
比如老年人、长期住院者、肿瘤患者、反复尿路感染或呼吸道感染的人,如果报告提示耐药背景较高,就更不适合随意、反复地经验用药。
在感染控制中,它也可能有提示价值
有些耐药基因不仅影响个体治疗,也有传播风险。
比如某些碳青霉烯酶基因、万古霉素耐药相关基因、多黏菌素耐药基因,如果出现在医院环境、重症病房或高风险患者身上,就可能提示需要关注感染控制问题。
这时,耐药基因结果不仅是这个人用什么药,也可能是在提醒:这个耐药风险会不会在更大范围内传播。
可能帮助医院更早识别需要关注的人群或环境,配合隔离、手卫生、环境消毒、抗菌药物管理等措施,减少耐药菌传播。
对公共卫生耐药基因的监测
耐药基因库是公共卫生关注的重要内容。社区、医院、养殖业、污水系统中的耐药基因传播,可能增加未来耐药感染风险。因此,在群体水平监测耐药基因非常有意义。
但对个体来说,不能把公共卫生风险直接等同于个人疾病诊断。
所以,耐药基因检出的意义,不是把报告变成处方。更准确地说,它的价值在于:
误区一
× 检出耐药基因就是耐药感染
这是最常见误区。耐药基因是遗传信息,感染是临床疾病,二者不是一回事。
误区二
× 没检出耐药基因就一定不耐药
反过来也不能这样理解。可能数据库未收录相关机制,可能检测深度不足,可能耐药来自突变、表达调控、生物膜或其他非典型机制。
误区三
× 16S能准确判断用什么抗生素
常规16S rRNA测序主要看菌群组成,不是直接检测完整耐药基因。它报告里的耐药风险,很多时候是根据菌群结构和数据库背景做出的间接推断。
16S更适合做微生态评估和风险提示,不适合直接决定抗生素怎么用。
误区四
× 宏基因组能完全替代培养药敏
宏基因组很有价值,尤其在难培养、用药后、疑难感染中。但它不能完全替代培养和药敏,特别是在需要精准用药时。
误区五
× 耐药基因越多越需要治疗
健康人群或肠道菌群报告中,耐药基因多不代表需要治疗。滥用抗生素反而可能加重菌群紊乱和耐药选择压力。
对于没有感染证据的人来说,重点不是清除耐药基因,而是合理用药、减少不必要抗生素暴露、保护肠道微生态。
误区六
× 耐药基因说明生活不卫生
耐药基因广泛存在于环境和人体微生态中,不能简单归因于个人卫生问题。
误区七
× 耐药基因就是“超级细菌”
所谓“超级细菌”,通常指对多种抗生素耐药、治疗选择有限、可能导致严重感染的细菌。
耐药基因可能参与这种情况,但单独检出某个耐药基因,并不等于体内已经有了超级细菌。
谷禾健康
产前抑郁
在围产期健康管理中,产前抑郁(antenatal depression, AND)正在受到越来越多关注。相比产后抑郁,产前抑郁过去长期处于相对被低估的位置,但它的发生率并不低。
既往荟萃分析显示,无论以抑郁症状还是临床诊断作为标准,产前抑郁的全球患病率均接近20%。
从临床结局来看,产前抑郁已被证明与多种不良母婴结局相关,包括流产风险增加、早产、低出生体重等。
近几年,研究视角开始进一步延伸到儿童早期发育。越来越多研究关注母亲孕期抑郁症状对子代神经发育的影响,例如婴儿认知、语言、运动、问题解决能力和社会行为等发育维度。
但目前相关结果并不完全一致。一个重要原因可能是不同研究关注的抑郁暴露时间窗口不同。过去不少研究集中在孕晚期,而对孕早期、孕中期,或整个孕期持续性抑郁症状的影响关注不足。
但胎儿脑发育贯穿整个孕期。只看孕晚期,可能会低估早期情绪风险对子代发育的影响。
更关键的是,产前抑郁究竟如何影响子代神经发育,目前仍缺乏清晰机制。过去的解释更多集中在 HPA 轴、皮质醇、炎症反应、胎盘功能和母体代谢状态等方面。而近年来,肠道菌群逐渐成为一个新的机制切入点。
已有研究显示,抑郁和焦虑状态可改变肠道菌群组成;孕期焦虑、抑郁症状也与菌群多样性下降及特定菌群丰度变化有关。但这些研究多为横断面或小样本研究,较少追踪整个孕期菌群动态,也难以回答菌群变化是否真正参与了子代神经发育异常。
这里就出现了一个很关键的问题:
产前抑郁是否会通过改变母体肠道菌群,影响胎儿脑发育和出生后的神经认知表现?
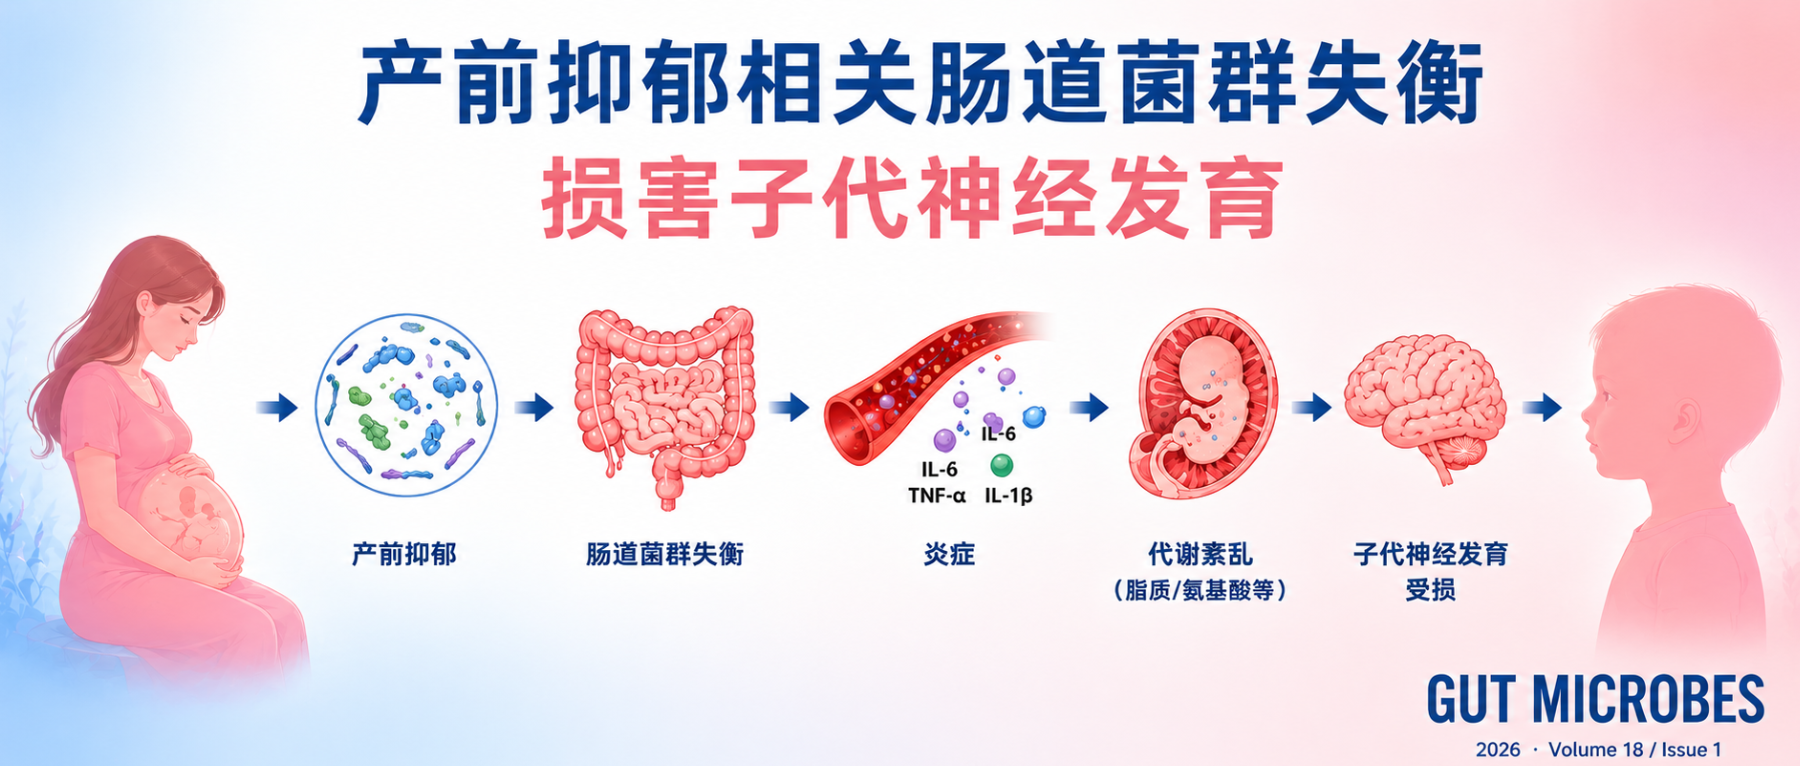
近期,来自上海复旦大学妇产科医院和上海交通大学的研究团队发表在《Gut Microbes》的一篇研究,正是从这个问题切入。
研究人员结合多中心前瞻性孕妇队列、嵌套病例对照菌群分析、无菌小鼠粪菌移植实验以及丁酸补充实验,系统验证了孕期抑郁症状与婴儿神经发育受损之间的关系。
产前抑郁与婴儿早期神经发育受损相关,主要表现为婴儿问题解决和社交能力的下降,而且孕早、中、晚期的抑郁都会导致这一问题。机制上可能是通过母体肠道菌群失衡,尤其是产丁酸菌减少,导致肠屏障受损、炎症增强及胎儿脑代谢异常,从而影响神经发育。对母亲和婴儿的菌群检测显示,母婴之间肠道菌群传递较少。在小鼠实验中,粪菌移植实验表明,仅母体抑郁相关肠道菌群即可导致后代学习记忆能力下降。而丁酸补充可以改善炎症、代谢异常及后代认知表现。
对于围产期健康管理而言,这意味着孕期情绪风险背后,可能存在值得更早关注的微生态信号。
这项研究的设计比较完整,先在人群中确认关联,再通过菌群分析寻找机制线索,最后用动物实验验证因果可能。
◆ 人群队列:追踪孕期抑郁与婴儿发育
研究首先纳入 2053 名孕妇,在孕早期、孕中期和孕晚期分别使用 EPDS 量表评估产前抑郁症状,并在婴儿 3、6、12 月龄时随访神经发育表现。
随访重点包括:
注:EPDS量表是目前全球公认且广泛使用的围产期抑郁筛查工具。
◆ 菌群分析:寻找可能的机制线索
随后,研究者从队列中开展嵌套病例–对照分析,匹配出 135 名产前抑郁风险孕妇和 135 名对照孕妇,并对 504 份孕期母体粪便样本进行 16S rRNA 测序,追踪孕早、中、晚期肠道菌群变化。
在菌群分析上,研究除了关注哪些菌升高或降低,进一步将相关菌群归纳为共丰度模块,并结合功能预测,观察这些菌群变化可能对应哪些代谢通路异常。
同时,研究还收集了 290 份婴儿粪便样本,用于判断产前抑郁是否会影响婴儿出生后的菌群建立,以及母婴菌群传递是否参与神经发育异常。
◆ 动物实验:验证菌群是否具有因果作用
在人群研究之外,研究者进一步使用无菌小鼠进行粪菌移植(FMT):将产前抑郁风险女性和健康女性的菌群分别移植给无菌孕鼠,观察:
◆ 干预验证:丁酸是否是关键线索
最后,研究加入丁酸补充实验,用来验证产丁酸菌减少是否可能是关键干预点。
编辑
这样的设计超越了单纯的相关性分析,进一步挖掘了菌群是否参与其中及相关机制,以及是否存在可干预的代谢节点。
【 队列研究 】
在2053名女性的队列研究中,326名(15.9%)至少有一次EPDS ≥10 在妊娠期间(AND高危组),1634人(79.6%)没有(对照组)。
【 婴儿随访 】
对1岁以下的婴儿进行神经发育评估。AND高危组婴儿在3个月和6个月时的问题解决任务得分较低(P = 0.039,0.040)。
编辑
◐ 母亲孕期抑郁越明显,婴儿问题解决能力越弱
尤其是在 3 月龄时,EPDS 评分较高的母亲,其婴儿在问题解决能力和社交能力方面得分更低。
研究者还使用重复测量 GEE 模型进行分析,结果同样显示:无论是在孕早期、孕中期还是孕晚期,母亲 EPDS 评分越高,婴儿的问题解决能力越差。
◑ 嵌套病例–对照研究,再次验证
与对照组相比,存在产前抑郁症状的母亲,其婴儿在 3 月龄时问题解决能力更低,在 6 月龄时社交能力也更弱。
编辑
从这部分结果看,产前抑郁症状与婴儿早期神经发育表现下降存在关联,尤其集中在问题解决能力和社交能力等维度。
更重要的是,这种关联并不只出现在孕晚期。孕早期、孕中期和孕晚期 EPDS 评分升高,都可能与婴儿后续问题解决能力下降有关。也正因为如此,研究下一步需要回答:这种影响是否只是情绪状态本身带来的结果,还是与孕期母体肠道菌群变化有关?
在人群队列中,研究已经看到产前抑郁症状与婴儿早期神经发育表现下降有关。接下来,研究者进一步想了解:这种关联背后,母体肠道菌群是否发生了可识别的变化?
先区分“抑郁阶段”和“非抑郁阶段”
经过质量控制,504份来自不同孕期的母体粪便样本可供分析,覆盖孕早期、孕中期和孕晚期。
这里研究者并没有简单把孕妇分成“抑郁组”和“非抑郁组”,而是根据采样当时的 EPDS 评分,把样本进一步分为三类(下图d)。
编辑
这个分组很重要,可以帮助判断,菌群变化到底只出现在EPDS升高的阶段,还是在产前抑郁风险人群中具有一定持续性。
校正孕期阶段后,菌群差异仍然存在
孕期本身会影响肠道菌群。孕早期、孕中期和孕晚期,母体激素、免疫和代谢状态都在变化,菌群结构也会随之调整。
因此,研究人员采用PERMANOVA 分析评估了宿主因素在孕期对母体肠道菌群的影响。
结果显示,妊娠期是最显著的影响因素,其次为 产前抑郁症状。
编辑
具体来看,孕早期与孕中期之间的菌群差异显著(P < 0.05),孕早期与孕晚期之间的菌群差异更显著(P < 0.001),但孕中期与孕晚期之间差异不显著。
这说明,研究产前抑郁相关菌群变化时,必须先排除孕期自然变化的影响。
在校正妊娠阶段后,PERMANOVA 分析显示,AND-D 组与对照组之间(FDR P = 0.019),以及 AND-N 组与对照组之间(FDR P = 0.010)均存在显著差异。
编辑
分孕期来看:
也就是说,产前抑郁相关菌群改变并不只局限在某一次 EPDS≥10的抑郁阶段,即使某一阶段评分暂时低于阈值(也就是说非抑郁状态),菌群结构仍然可能与健康对照不同。
这提示一个关键信号:产前抑郁相关的母体菌群变化,更像是一种持续性的微生态特征,而不是短期情绪波动带来的偶然变化。
核心变化:产丁酸菌减少和代谢通路紊乱
接下来,研究者进一步分析到底是哪些菌群发生了改变。
他们将所有微生物群划分为 50 个共丰度菌群模块 CAGs,这种分析方式不是只看单个菌属升高或降低,而是观察一组具有相似变化趋势和潜在功能关联的菌群模块。
在校正孕前BMI、教育水平、孕周、产妇年龄、妊娠糖尿病、抗生素、益生菌、GBS感染等因素后,研究最终识别出 15个显著改变的CAGs。
编辑
其中,AND-D 和 AND-N 组中多个产丁酸菌相关模块持续下降,包括Eubacterium、Ruminococcaceae、Faecalibacterium、Oscillospiraceae 等。
这些菌群与短链脂肪酸,尤其是丁酸的产生密切相关。丁酸不仅是肠上皮细胞的重要能量来源,也参与维持肠屏障完整性、调节炎症反应和免疫稳态。
换句话说,产前抑郁相关菌群失衡的核心,指向了一个更具体的功能问题:产丁酸能力下降。
关于一些重要产丁酸菌属详见谷禾之前的文章:
肠道核心菌属——优/真杆菌属(Eubacterium),你为什么要关心它?
肠道核心菌属——普拉梭菌(F. Prausnitzii),预防炎症的下一代益生菌
肠道重要菌属——颤螺菌属 (Oscillospira),它为什么如此神秘?
与此同时,以 Streptococcus 为主的CAG36在产前抑郁相关样本中升高。
结合既往研究中Streptococcus与炎症、抑郁状态之间的关联,这一变化也提示母体肠道微生态可能向更促炎的方向偏移。
功能层面:脂肪酸和氨基酸代谢通路异常
菌群组成变化之外,研究还进一步做了功能预测。
功能预测还显示,抑郁阶段和非抑郁阶段都存在多条代谢通路异常,包括:
编辑
多不饱和脂肪酸与胎儿脑发育、神经细胞膜结构和炎症调节有关;氨基酸代谢则与神经递质合成、抗氧化能力和基础代谢密切相关。
这部分结果进一步说明:产前抑郁相关菌群失衡,可能不仅是菌群结构变化,还涉及母体肠道代谢功能的改变。
但这还只是母体菌群层面的发现。下一步更关键的问题是:这些菌群变化,是否真的和婴儿后续神经发育表现有关?
在明确产前抑郁孕妇存在持续性母体菌群失衡之后,研究进一步探讨了:这些孕期菌群变化是否会影响婴儿神经发育。
婴儿自身菌群:并非主要解释因素
研究者首先分析了婴儿出生后的肠道菌群,共纳入 290份婴儿粪便样本进行 16S rRNA 测序。
结果显示,影响婴儿肠道菌群组成的主要因素是采样时间、分娩方式和喂养方式,其中采样时间的影响最大。
编辑
这说明婴儿出生后肠道菌群本身处于快速建立和变化阶段,且明显受到出生方式、喂养方式等因素影响。
母亲是否存在产前抑郁症状,并没有显著影响婴儿出生后的菌群整体组成。
编辑
这表明婴儿自身菌群的波动很大,很难作为母亲情绪与婴儿神经发育之间关联的中介因素。
母婴菌群垂直传递证据有限
分析母婴共享的 ASVs 后发现,整体共享数量不多。只有一个Clostridium sensu stricto 1 相关 ASV 在产前抑郁风险组中共享率较高(P=0.034),并与婴儿神经发育评分存在一定关联趋势。但该 ASV 在极少数样本中出现,不足以解释整体神经发育差异。
编辑
由此可见,母婴菌群垂直传递并不是本研究中主要的机制线索。
孕期母体菌群更关键
研究者在校正母亲年龄、孕前 BMI、孕周、教育水平、妊娠糖尿病、抗生素和益生菌使用等因素后发现:
编辑
也就是说,这些菌群模块丰度越低,婴儿在认知、问题解决、个人-社会能力等方面的表现可能越弱。
编辑
婴儿出生后的菌群不构成主要中介。母婴垂直传递有限,婴儿肠道菌群受时间、分娩方式和喂养方式影响更大。
孕期母体菌群失衡可能是核心机制。特别是产丁酸菌相关模块下降和代谢通路功能扰动,与婴儿早期认知和社交能力存在正相关。
产前抑郁可能通过影响母体肠道菌群代谢环境,改变胎儿脑发育微环境,从而在婴儿早期表现为认知和社交能力下降。
为什么要做FMT验证?
因为孕期情绪状态、饮食、睡眠、家庭环境、遗传背景、妊娠并发症等因素,都可能同时影响母体菌群和婴儿发育结果。
因此,需要可以尽量把“菌群因素”从复杂的人群背景中单独提取出来。
FMT模型怎么做?
研究者从产前抑郁风险女性和健康对照女性中选择粪菌供体,将其菌群分别移植给无菌雌鼠,之后让小鼠妊娠,并观察孕鼠和后代的变化。
编辑
动物实验主要分为三组:
• Control_M组:接受健康对照女性菌群;
• AND_M组:接受产前抑郁风险女性菌群;
• AND + butyr_M组:接受产前抑郁风险女性菌群,同时在孕期补充丁酸。
编辑
FMT模型是否成功建立?
从菌群组成看,移植后小鼠的肠道菌群能够较好地反映对应供体来源。
注:E18.5,指胚胎第18.5天,接近小鼠足月分娩前阶段。
编辑
这说明FMT模型基本建立成功,后续观察到的母体和子代差异,可以进一步用于评估AND相关菌群的潜在作用。
产前抑郁相关菌群影响了后代学习记忆表现
研究者在后代小鼠12周龄时进行 Morris水迷宫实验,用于评估学习和空间记忆能力。
编辑
结果显示,与Control_M组相比,AND_M组后代在水迷宫测试中表现出明显的认知受损特征:
编辑
这些结果说明,接受产前抑郁风险女性菌群的孕鼠,其后代在学习记忆能力上出现下降。
值得注意的是,开放场实验中,AND_M组后代在活动距离、中心区停留时间、进入中心区次数等指标上没有显著差异。这提示AND相关菌群在该模型中更明显影响的是认知和学习记忆相关行为,而不是广泛诱导焦虑或抑郁样行为。
总的来说,在无菌小鼠FMT实验中,研究者进一步看到:仅仅移植AND相关母体菌群,就可以诱导后代出现认知行为异常。
这说明,产前抑郁相关菌群不只是一个伴随现象,而可能是参与子代神经发育异常的重要中介因素。
在人群研究中,产前抑郁症状、母体菌群失衡和婴儿神经发育下降之间存在关联。而在无菌小鼠实验中,研究者进一步看到,仅仅移植AND相关母体菌群,就可以诱导后代出现认知行为异常。
这说明,产前抑郁相关菌群不只是一个伴随现象,而可能是参与子代神经发育异常的重要中介因素。既然产前抑郁相关菌群本身能够影响后代认知表现,下一步就需要了解:它是通过什么路径影响胎儿脑发育的?
从动物实验和多组学结果来看,机制主要集中在几条连续线索上:
编辑
母体肠道:紧密连接蛋白下降,肠屏障受损
研究者首先观察孕鼠肠道屏障状态。结果显示,接受 AND 相关菌群的孕鼠,结肠组织中多个紧密连接蛋白表达下降,包括 claudin-1、ZO-1 和 ZO-2(下图a–d)。
编辑
这些蛋白是维持肠上皮屏障完整性的关键结构。它们下降,说明肠道屏障稳定性变差,肠腔内微生物相关成分或炎症刺激物更容易影响母体系统环境。
也就是说,AND 相关菌群进一步影响了母体肠道屏障功能。
母体和胎儿脑炎症信号同步增强
在肠屏障受损的同时,研究者还检测到母体炎症水平升高。
与对照组相比,AND_M 组孕鼠血清中的 TNF-α 和 IL-1β 水平均升高(下图e、f)。
编辑
这提示 AND 相关菌群可能诱导母体系统性低度炎症反应。
更关键的是,这种炎症信号并没有停留在母体端。胎儿小鼠脑组织中同样出现炎症相关变化:ELISA 结果显示,AND_M 组胎儿小鼠脑内 TNF-α 和 IL-1β 水平升高(下图j、k)。
编辑
转录组分析也支持这一点。AND_M 组胎儿小鼠脑中多条炎症相关通路被激活,包括 TNF 信号通路、IL-17 信号通路、Toll-like receptor 通路、NOD-like receptor 通路、趋化因子和细胞因子相互作用通路等(下图a、c)。
编辑
这说明,AND 相关菌群可能通过“肠屏障受损—母体炎症增强—胎儿脑炎症微环境改变”这一方式,参与胎儿脑发育异常。
胎儿脑代谢:PUFA 和氨基酸代谢异常
除了炎症,研究者还对胎儿小鼠脑组织做了代谢组分析。
结果显示,AND_M 组胎儿小鼠脑内代谢谱与对照组明显不同(下图g)。其中,一个突出的变化是多不饱和脂肪酸(PUFA)相关代谢通路下降,包括亚油酸、α-亚麻酸、花生四烯酸等相关代谢路径(下图k)。
编辑
具体代谢物上,AND_M 组胎儿脑中 anandamide、PC(14:0/20:4) 等脂质相关分子下降(下图h、i)。这些分子与神经细胞膜结构、突触功能、神经炎症调节都有关系。
编辑
同时,氨基酸相关代谢也受到影响。例如 L-alanine 水平下降(图j),并伴随半胱氨酸、甲硫氨酸、牛磺酸等相关代谢路径异常。
胎儿脑组织:突触和脂质代谢相关基因变化
转录组结果进一步补充了这一机制链。
在 AND_M 组胎儿脑中,脂质代谢相关通路和突触相关通路下调,包括谷氨酸能突触、5-羟色胺能突触等相关信号(图c)。
编辑
同时,关键基因如 Pla2g4b、Pla2g4d 表达下降(图e、f)。
编辑
综合来看,AND相关菌群可能通过多个相互关联的环节影响胎儿脑发育:
这些变化共同指向一个结果:胎儿脑发育所依赖的免疫和代谢环境被扰动,最终可能表现为后代认知功能下降。
既然前面的菌群结果反复指向产丁酸菌减少,而动物模型中也观察到肠屏障和炎症异常,那么如果补充丁酸,是否能够部分逆转这些异常?
研究者进一步设置了 AND + butyr_M 组:在接受 AND 相关菌群移植的基础上,于小鼠孕期补充丁酸,观察能否逆转部分异常表型。
丁酸补充提高了胎盘丁酸水平
结果显示,与 AND_M 组相比,AND + butyr_M 组胎盘丁酸水平明显升高。
编辑
这说明丁酸补充改变了模型中的丁酸供应状态,也为后续观察行为、炎症和代谢变化提供了基础。
后代认知行为得到部分改善
在 Morris 水迷宫实验中,丁酸补充组后代的认知表现有所改善。
与 AND_M 组相比,AND + butyr_M 组后代的小鼠学习记忆表现有所改善:
编辑
说明,丁酸补充可以部分缓解 AND 相关菌群导致的学习记忆能力下降。不过需要注意,这里是部分改善,并不是完全逆转所有行为异常。
胎儿脑代谢异常,出现恢复趋势
小鼠代谢组结果进一步显示,丁酸补充后,AND_M 组中被下调的部分 PUFA 代谢和氨基酸代谢通路出现恢复趋势。
编辑
PUFA 代谢与神经细胞膜结构、突触功能和炎症调节有关;氨基酸代谢则与神经递质、抗氧化能力和脑发育基础代谢密切相关。因此,这一结果提示,丁酸可能通过改善胎儿脑内脂质和氨基酸代谢环境,参与神经发育保护。
炎症信号和肠屏障损伤也有所缓解
小鼠实验的转录组结果显示,丁酸补充后,小鼠胎儿脑内部分炎症相关基因表达下降,例如 ccl21b、cd14、ms4a2 等;同时,脂质代谢相关基因 Pla2g4b 表达升高。
ELISA 结果也显示,AND + butyr_M 组胎儿脑内TNF-α 和 IL-1β 水平下降。
丁酸补充的影响并不只体现在胎儿脑代谢上。
在小鼠母体端,丁酸补充还部分恢复了结肠紧密连接蛋白表达,包括 claudin-1、ZO-1、ZO-2,并降低了母体血清中的炎症因子水平。
编辑
这些结果提示,产丁酸菌减少及丁酸不足,可能是 AND 相关菌群影响子代神经发育的重要机制节点。
更准确地说,产前抑郁相关菌群可能通过削弱产丁酸能力,影响母体肠屏障和炎症状态,并进一步扰动胎儿脑内代谢环境;而丁酸补充能够部分缓解这些变化。
但这仍然是动物实验结果,不能直接推导为临床建议。对于临床和健康管理场景,更稳妥的理解是:围产期微生态干预可以重点关注产丁酸菌、膳食纤维摄入、短链脂肪酸代谢能力和肠屏障状态。
过去在围产期健康管理中,情绪问题、肠道问题、营养问题和婴儿发育问题,往往是分开处理的。
这项研究提示,这些问题之间可能存在更深的连接。产前抑郁症状并不只是一个心理状态,它可能伴随母体肠道菌群重构,尤其是产丁酸菌减少,并进一步影响肠屏障、炎症反应、胎儿脑内多不饱和脂肪酸和氨基酸代谢。
也就是说,孕期情绪风险背后,可能有一部分生理和微生态基础可以被更早观察到。
围产期情绪管理可以前移,并做风险分层
这项研究显示,孕早期、孕中期和孕晚期的EPDS评分升高,都可能与婴儿后续神经发育表现下降有关。
临床产前抑郁筛查不应只集中在孕晚期或产后。孕早期建档时,就应该开始关注情绪风险。
同样是情绪风险,有些孕妇可能主要受压力、睡眠、家庭支持等因素影响;也有一部分孕妇,可能同时伴随肠道微生态、炎症和营养代谢方面的问题。
产丁酸菌,值得成为孕期微生态评估中的重点观察方向。在该研究中,产丁酸菌Eubacterium、Faecalibacterium、Ruminococcaceae、Oscillospiraceae 等相关菌群模块在产前抑郁风险样本中下降,并且与婴儿神经发育评分存在关联。
编辑
<来源:谷禾健康肠道菌群检测数据库>
实际评估中,核心菌属中这些产丁酸菌以及丁酸盐、丙酸盐、乙酸盐等短链脂肪酸指标,都可以作为观察产丁酸能力和肠道代谢支持状态的线索。
如果这类指标已经显示出不足,即使孕妇还没有明显情绪问题,也可以提示其肠道生态和代谢环境可能存在潜在风险。后续管理就可以更早关注她的饮食结构、膳食纤维摄入、肠道症状、睡眠状态以及炎症相关风险,而不是等到情绪或消化问题明显后才处理。
编辑
<来源:谷禾健康肠道菌群检测数据库>
这类信息不一定直接指向某种疾病,但可以帮助管理者更早识别需要重点关注的人群。但筛查只是第一步,还可以对情绪风险孕妇做进一步分层。
如果孕妇已经出现EPDS评分升高或明显情绪风险,肠道菌群检测可以辅助判别:这个情绪风险背后,是否同时存在肠道微生态和代谢环境异常。
若同时观察到产丁酸菌减少、短链脂肪酸能力不足、肠屏障压力或炎症相关指标异常,那么管理重点除了在心理支持上,也需要同步考虑饮食结构、膳食纤维摄入、肠道症状改善、睡眠和炎症风险管理。
编辑
<来源:谷禾健康肠道菌群检测数据库>
面向孕期健康的转化思路
肠道菌群检测适合嵌入临床已有的孕期评估流程,作为情绪筛查、产科评估和营养评估之外的补充信息,帮助医生判断是否需要进一步联合营养、肠道或生活方式干预。
在健康管理中,把菌群检测放进孕期服务流程中,比如孕早期建立肠道菌群基线状态,孕中晚期结合饮食、睡眠、肠道症状和菌群变化做再评估。
作为产品开发来说,这篇研究提供了一个更具体的思路。有转化价值的方向,可能是把产品功能落到产丁酸能力、短链脂肪酸生成、肠屏障支持和营养代谢这些环节上,设计检测、干预方案。
编辑
未来的围产期健康管理,会越来越强调前置识别。
不是等到婴儿发育问题出现后再回头寻找原因,也不是等到孕妇症状明显后才开始处理,而是在孕期就尽量识别那些可能影响母体状态和胎儿发育环境的信号。
情绪状态是信号,肠道菌群也是信号,营养和炎症状态同样是信号。
这篇研究让我们看到,这些信号之间可能存在联系。肠道菌群不是全部答案,但它可以成为理解孕期母体状态、进行风险分层和制定管理策略的重要入口。
主要参考文献
Zhou, Fangyue, et al. “Antenatal depressive symptoms impair offspring neurodevelopment by inducing maternal gut microbiota dysbiosis during pregnancy.” Gut Microbes 18.1 (2026): 2672188.
谷禾健康
传统治疗的局限
目前焦虑障碍的一线治疗方案主要包括药物治疗(如SSRIs、SNRIs)和认知行为治疗(CBT)。但它们的局限性也同时也存在:例如起效慢(通常需要2-4周)、有效率有限、存在副作用、停药后复发风险较高。
正是因为这些局限,才迫切地需要寻找新的治疗靶点和干预策略。而微生物-肠-脑轴的发现,为焦虑障碍的防治开辟了一个充满希望的新方向。
在深入讨论肠道菌群与焦虑的关系之前,我们先快速了解一下微生物-肠-脑轴:
微生物-肠-脑轴
这是一个连接肠道微生物、肠道和大脑的复杂通信网络,允许肠道微生物与中枢神经系统之间进行双向的信息交流。
简单来说:大脑的活动可以影响肠道菌群的组成,反过来,肠道菌群的变化也可以影响大脑的功能和行为。
这个通信网络主要通过四大通路实现:
了解了肠道和大脑之间存在密切的联系,接下来看看在真实的焦虑患者中,他们的肠道菌群真的发生了改变吗?如果有,具体是哪些细菌发生了变化?
在比较了焦虑障碍患者和健康对照者的粪便菌群组成,发现:
广泛性焦虑障碍 · 菌群特征
Chen等人在《Journal of Affective Disorders》上发表了一项针对36名广泛性焦虑障碍(GAD)患者的研究。研究结果表明,GAD患者的肠道菌群与健康对照者存在显著差异。
编辑
α多样性↓↓
α多样性也就是菌群的丰富度和均匀度:GAD患者的菌群丰富度显著降低,OTU(可操作分类单元)数量明显少于健康对照。这意味着,焦虑患者的肠道菌群多样性更低,而菌群多样性通常被认为是肠道健康的重要标志。
厚壁菌门↓↓ 拟杆菌门和梭杆菌门↑↑ 产丁酸菌↓↓
Faecalibacterium、Eubacterium rectale、Sutterella、Lachnospira、Butyricicoccus等产丁酸的有益菌属在健康对照中富集,而在GAD患者中减少。
Ruminococcus gnavus、Fusobacterium等潜在的促炎菌属在GAD患者中显著增加。
doi.org/10.1016/j.jad.2019.08.014
社交焦虑障碍 · 菌群特征
社交焦虑障碍(SAD)是另一种常见的焦虑障碍,但关于SAD患者菌群特征的研究相对较少。直到2023年,爱尔兰科克大学的Butler团队在《Translational Psychiatry》上发表了一项重要研究,首次采用全基因组鸟枪法测序技术对31名SAD患者和18名性别、年龄匹配的健康对照者进行了研究。
编辑
菌群特征:Anaeromassillibacillus↑↑
研究再次证实了焦虑患者存在独特的菌群特征:
在整体菌群组成(β多样性)上,SAD组与对照组存在显著差异;
编辑
doi.org/10.1038/s41398-023-02325-5
菌群功能:天冬氨酸降解I ↑↑
除了菌群组成的差异,这项研究还首次发现了SAD患者菌群功能的改变。在功能水平上,SAD患者的肠道代谢模块”天冬氨酸降解I“显著升高。天冬氨酸是一种重要神经递质前体,其代谢通路的异常可能通过改变神经递质水平影响大脑功能。
肠道屏障受损
研究人员还有一个重要的发现,SAD患者的肠道屏障完整性受损。肠道屏障受损意味着肠道通透性增加,细菌成分和代谢产物更容易进入血液循环,引发免疫激活和炎症反应,进而影响中枢神经系统功能。
跨研究特征:不同精神疾病共有的菌群标记
越来越多的研究表明,很多精神疾病,包括抑郁症、双相情感障碍、精神分裂症、自闭症等,都存在不同程度的菌群失调。而且,不同疾病之间似乎存在一些共同的菌群特征。
例如,2023年一项纳入了1054名参与者的队列研究发现,产丁酸菌的减少是多种精神疾病共有的特征,包括抑郁症和焦虑症。产丁酸菌的减少与炎症水平升高、神经递质合成异常密切相关。
编辑
doi:10.1001/jamapsychiatry.2021.2573
这些跨研究的共同特征提示我们:菌群失调可能不是某一种精神疾病的特有表现,而是多种精神疾病共享的潜在病理机制。这也解释了为什么焦虑和抑郁常常共病——它们可能有着共同的生物学基础,而肠道菌群失调就是其中之一。
可能有人觉得,相关性不等于因果性,这是科学研究中最重要的原则之一。横断面研究虽然清晰地展示了焦虑障碍与肠道菌群失调之间的关联,但无法确定因果方向:
孟德尔随机化:遗传学的自然实验
孟德尔随机化被称为自然的随机对照试验,是目前在观察性研究中确立因果关系最有力的方法之一。
它的基本原理很简单:根据孟德尔遗传定律,我们的基因是在出生时随机分配的,不受后天环境因素的影响。如果某个基因变异与我们感兴趣的暴露因素(如某种细菌的丰度)相关,而这个基因变异又与结局(如焦虑障碍)相关,那么我们就可以推断暴露因素与结局之间存在因果关系。
突破性发现:9种与焦虑因果相关的细菌属
2024年,上海交通大学的Li等人在《BMC Psychiatry》杂志上发表了一项具有里程碑意义的孟德尔随机化研究,首次在人类中系统地评估了肠道菌群与焦虑障碍之间的因果关系。
这项研究整合了多个大型GWAS数据集,共纳入了18,340名参与者的全基因组数据,分析了数百种细菌属的丰度与焦虑障碍风险之间的关系。通过严格的敏感性分析和多方法验证,研究人员最终确定了9种与焦虑障碍存在因果关联的细菌属。
编辑
这些发现通过了多种敏感性分析的验证,包括MR-Egger截距分析(检测水平多效性)、MR-PRESSO分析(检测异常值)和留一法分析(验证结果的稳定性),所有分析都得到了一致的结果。而且所有工具变量的F统计量均超过10。
这些发现意味着什么?
这项研究第一次在人类中通过遗传学方法确立了特定肠道菌群与焦虑障碍之间的因果关系。
仔细观察这些细菌的特点,会发现一些重要的规律:
4种保护菌属中有3种都是已知的产丁酸菌
Blautia、Butyricicoccus都是产短链脂肪酸菌(详细认识这些菌可以关注谷禾健康以往的文章),它们通过发酵膳食纤维产生丁酸。而丁酸是一种具有多重神经保护和抗焦虑作用的关键代谢产物。
其次,Parasutterella这个菌属在社交焦虑障碍的研究中也出现过——它在健康对照者中富集,而在SAD患者中减少。不同的研究方法(横断面研究和孟德尔随机化)得到了一致的结果,进一步增强了结论的可靠性。
如果多种风险菌同时增加、多种保护菌同时减少,累积的效应就会非常显著。而且,菌群是可以调节的——通过饮食、益生菌等方式增加保护菌的丰度,就有可能实实在在地降低焦虑风险。
现在我们已经知道,特定的肠道菌群确实可以因果性地影响焦虑风险。那么,这些肠道菌群,究竟是如何跨越肠-脑屏障,影响我们遥远的大脑的呢?
经过二十年的研究,科学家们已经基本阐明了菌群影响大脑的六大核心机制:HPA轴调节、免疫调节、色氨酸代谢、短链脂肪酸信号、内源性大麻素系统,以及海马神经发生。
HPA轴调节:应激反应的总开关
下丘脑-垂体-肾上腺轴(HPA轴)是人体对应激反应的核心调控系统,也被称为应激反应的”总开关”。当我们面临压力时,下丘脑会分泌促肾上腺皮质激素释放激素(CRH),刺激垂体分泌促肾上腺皮质激素(ACTH),ACTH再作用于肾上腺皮质,促进糖皮质激素(在人类中是皮质醇)的合成和释放。
编辑
大量的临床前研究表明,肠道菌群在HPA轴的早期发育和持续调节中发挥着关键作用。
无菌小鼠表现出过度的HPA轴反应——面对应激时,它们的皮质酮水平比正常小鼠高出两倍以上,表现出明显的焦虑样行为。而如果在生命早期给无菌小鼠定植正常的肠道菌群,就能逆转这种异常。
这说明,肠道菌群在生命早期为HPA轴的发育设定了基线。如果生命早期菌群失调,就可能导致HPA轴的调定点过高,使得个体在一生中都对应激更加敏感,更容易患上焦虑等应激相关疾病。
免疫调节:炎症是情绪的隐形推手
第二条重要的通路是免疫调节。肠道是人体最大的免疫器官,约70%的免疫细胞位于肠道相关淋巴组织中。肠道菌群是免疫系统最重要的训练者和调节者——它们帮助免疫系统区分”自己”和”异己”,维持免疫激活和免疫耐受之间的微妙平衡。
编辑
当肠道菌群失调时,这种平衡就会被打破,主要表现为两个方面:
这两个因素共同作用,会导致低度慢性炎症。与急性炎症不同,低度慢性炎症没有红、肿、热、痛等明显症状,而是表现为血液循环中促炎细胞因子(如IL-6、TNF-α、IL-1β等)水平的轻度升高。
这种低度慢性炎症正是连接肠道菌群与焦虑障碍的关键桥梁。
越来越多研究表明,焦虑障碍患者的外周血和脑脊液中,促炎细胞因子水平显著升高。
荟萃分析显示,焦虑患者的IL-6和TNF-α水平明显高于健康对照。而且,炎症水平与焦虑症状的严重程度呈正相关。
色氨酸代谢:5-羟色胺的前体争夺战
色氨酸是一种人体必需氨基酸,我们只能从食物中获取。色氨酸之所以重要,是因为它是5-羟色胺(血清素)的前体物质——而5-羟色胺是大脑中最重要的神经递质之一,与情绪调节、睡眠、食欲、冲动控制等多种功能密切相关。
肠道菌群能够影响大脑5-羟色胺水平的关键
人体中90%以上的5-羟色胺是在肠道中合成的,而不是在大脑中。虽然肠道中的5-羟色胺无法穿过血脑屏障进入大脑,但它可以通过多种途径间接影响大脑功能。更重要的是,大脑中5-羟色胺的合成还依赖于从血液中摄取的色氨酸。
进入人体的色氨酸有三条主要的代谢途径
编辑
对于焦虑障碍来说,最重要的是犬尿氨酸途径。多项研究已经证实,焦虑障碍患者的色氨酸代谢存在异常,犬尿氨酸途径过度激活。而Butler等人2025年的研究更是直接证明了社交焦虑障碍患者的犬尿氨酸代谢产物存在改变。
短链脂肪酸:细菌的神奇代谢产物
短链脂肪酸(SCFAs)是肠道细菌发酵难以消化的碳水化合物(膳食纤维)产生的主要代谢产物,主要包括乙酸、丙酸、丁酸三种。
短链脂肪酸可能是目前研究最充分的菌群-肠-脑轴信号分子,也是我们理解菌群如何影响大脑的关键钥匙。它们在肠脑交流中发挥着多重作用:
增强肠道屏障完整性
短链脂肪酸是结肠上皮细胞的主要能量来源,提供约70%的能量。它们可以促进肠道上皮细胞的增殖和分化,增强紧密连接蛋白的表达,维持肠道屏障的完整性,减少肠漏和后续的炎症反应。
调节血脑屏障通透性
短链脂肪酸不仅能保护肠道屏障,还能调节血脑屏障的通透性。研究表明,无菌小鼠的血脑屏障通透性增加,而补充SCFAs可以恢复血脑屏障的完整性。这意味着SCFAs可以保护大脑免受循环中神经毒素的侵害。
免疫调节作用
短链脂肪酸具有强大的抗炎作用。它们可以通过激活G蛋白偶联受体(GPR41、GPR43、GPR109A)和抑制组蛋白去乙酰化酶(HDAC)等途径,调节免疫细胞的分化和功能,抑制促炎细胞因子的产生。
调节HPA轴反应
SCFAs可以直接作用于肾上腺,调节糖皮质激素的合成,也可以通过迷走神经间接调节HPA轴的活性。研究表明,补充乙酸可以降低小鼠的应激反应,减少焦虑样行为。
直接的神经调节作用
SCFAs还可以直接作用于神经系统。它们可以刺激肠神经系统的感觉神经元,通过迷走神经向大脑传递信号;它们可以穿过血脑屏障,直接作用于大脑中的神经元和胶质细胞;它们还可以调节神经营养因子(如BDNF)的表达,促进神经发生和突触可塑性。
编辑
在这三种主要的SCFAs中,丁酸的研究最为充分,也被认为是最重要的有益代谢产物之一。有意思的是,几乎所有的保护菌属都是丁酸的主要产生菌。这完美地解释了为什么这些细菌可以降低焦虑风险——它们通过产生丁酸,发挥多重神经保护和抗焦虑作用。
海马神经发生:大脑可塑性的菌群调控
很长一段时间里,科学界普遍认为成年人类的大脑不会产生新的神经元。但近年来的研究已经证实,在大脑的两个特定区域——海马的齿状回和侧脑室的室管膜下区——神经发生可以持续终生。
海马是大脑中与学习记忆、情绪调节、应激反应密切相关的关键脑区
成年海马神经发生在这些功能中发挥着重要作用。越来越多的证据表明,海马神经发生减少是抑郁症和焦虑障碍的重要病理机制之一,而抗抑郁药和抗焦虑药的疗效也与促进海马神经发生有关。
肠道菌群是成年海马神经发生的重要调控者
多项研究表明,无菌小鼠的海马神经发生显著减少,而菌群定植可以恢复神经发生水平。益生菌干预、粪菌移植和高膳食纤维饮食(通过增加SCFAs产生)都可以促进海马神经发生,增加BDNF(脑源性神经营养因子)的表达。
BDNF是大脑中最重要的神经营养因子之一
它可以促进神经元的存活、增殖、分化和突触可塑性。BDNF水平降低在焦虑和抑郁的发病机制中扮演着核心角色,而几乎所有有效的抗抑郁治疗都会增加BDNF的表达。
几大通路的协同作用网络
这里,我们要强调的是,这六大通路并不是独立工作的,而是相互交织、相互影响,形成一个复杂的调控网络。例如:
这是一个恶性循环:任何一个环节的异常都会波及其他环节,最终导致整个系统的失衡。
但反过来,这也意味着我们有多个干预靶点:改善任何一个环节,都可能打破恶性循环,推动整个系统向健康的方向发展。例如,增加膳食纤维摄入→SCFAs增加→肠道屏障改善→炎症减少→HPA轴恢复正常→焦虑症状缓解。
可能大家更关心的问题是:我们能否通过主动调节肠道菌群来改善焦虑症状?
目前,基于微生物组的焦虑干预策略已经成为精神医学领域最热门的研究且干预逐步显现成效的方向之一。
益生菌:从补充细菌到改善情绪
在过去的二十年里,益生菌在情绪调节方面的作用得到了大量研究的验证:
健康人群的研究表明,益生菌可以降低自我报告的焦虑和抑郁水平,改善情绪认知加工;
在临床诊断的焦虑障碍患者中,益生菌干预可以显著降低汉密尔顿焦虑量表(HAMA)评分,同时降低血清炎症标志物水平;
在社交焦虑障碍患者中,益生菌干预可以改善社交焦虑症状,同时调节大脑边缘系统的活动;
在抑郁症患者中,益生菌作为辅助治疗可以显著增强抗抑郁药的疗效,降低复发风险。
需要特别注意的是,益生菌的作用具有高度的菌株特异性——不是所有的益生菌都有抗焦虑效果,也不是一种益生菌对所有人都有效。乳酸杆菌和双歧杆菌是两类已被用于焦虑治疗研究的细菌。
目前证据最充分的抗焦虑益生菌菌株主要集中在以下几个属:
乳杆菌属
鼠李糖乳杆菌
一项近期研究报告称,在一项包含 70 人的双盲随机对照试验(DB-RCT)中,含有鼠李糖乳杆菌及其他菌株的益生菌胶囊减少了焦虑。
一项动物研究中,据报道,补充鼠李糖乳杆菌可减少焦虑和抑郁行为,甚至可能改变小鼠大脑中 GABA 相关基因的活性。
瑞士乳杆菌
一项近期动物研究中,据报道,补充瑞士乳杆菌可减少大鼠与焦虑相关的行为。
相关研究还报道称,补充瑞士乳杆菌可保护小鼠免受西式饮食对焦虑行为造成的负面影响。
植物乳杆菌
一项包含 84 名肠易激综合征(IBS)患者的双盲随机对照试验(DB-RCT)中,含有植物乳杆菌的益生菌补充剂降低了与肠道相关的焦虑。
一项动物研究中,据报道,长期摄入植物乳杆菌可提高小鼠体内多巴胺和血清素水平,并减少焦虑样行为。另有报道称,它还能降低促炎性细胞因子,并提高经历早期生活压力的小鼠体内抗炎性细胞因子水平。
双歧杆菌属
长双歧杆菌
长双歧杆菌可减轻感染性结肠炎小鼠的焦虑样行为,这些作用似乎是通过迷走神经通路介导的。
一项人体研究中,据报道,连续 30 天每日服用瑞士乳杆菌和长双歧杆菌,可降低 25 名受试者的焦虑、敌意以及与压力相关的激素皮质醇水平。
产丁酸菌属
国际益生菌和益生元科学协会(ISAPP)推荐的益生菌剂量范围是每天至少摄入109-1010 CFU。需要坚持服用至少4-8周,因为菌群的改变需要时间。
益生元:喂养好细菌
如果说益生菌是直接补充好细菌,那么益生元就是喂养好细菌的食物。
益生元是人体无法消化的碳水化合物,但可以被肠道中的有益菌选择性发酵利用,促进它们的生长和代谢活性。
最常见的益生元包括:低聚果糖(FOS)、低聚半乳糖(GOS)、菊粉(Inulin)、抗性淀粉(Resistant Starch)、母乳低聚糖(HMOs)。
多项临床研究证实了益生元的抗焦虑作用。
例如,2015年的一项研究发现,健康志愿者连续3周服用低聚半乳糖(GOS)后,对消极情绪刺激的注意力偏向显著降低,这一效应与抗焦虑药的效果类似。
另一项研究发现,菊粉型果聚糖可以显著降低抑郁症患者的抑郁和焦虑评分,同时增加粪便中双歧杆菌的丰度。
值得注意的是,益生菌和益生元常常联合使用,这种组合被称为合生元。合生元可以同时发挥补充有益菌和喂养有益菌的双重作用,效果往往优于单独使用益生菌或益生元。
饮食调节
饮食是偏生活方式的菌群干预。饮食是塑造肠道菌群组成和功能的最重要的环境因素,其影响远远超过我们大多数人的想象。
研究表明,饮食的改变可以在短短几天内改变肠道菌群的组成。而且,饮食对菌群的影响是长期的——长期的饮食习惯会塑造出相对稳定的菌群特征。因此,通过调整饮食来改善菌群,进而改善情绪,是一种经济、安全、可持续的干预手段。
地中海饮食——情绪友好型饮食
地中海饮食泛指地中海沿岸国家的传统饮食模式,其核心特点包括:丰富的植物性食物(蔬菜、水果、全谷物、豆类、坚果)、橄榄油作为主要的脂肪来源、适量的鱼类和家禽、少量的红肉、适量的乳制品(主要是发酵乳制品,如酸奶、奶酪)、少量的红酒(随餐饮用)。
大量的流行病学研究表明,坚持地中海饮食与更低的抑郁和焦虑风险显著相关。
2017年著名的SMILES随机对照试验更是直接证明了饮食干预对抑郁症的治疗效果,饮食干预组有32%的患者达到了临床缓解标准,而对照组只有8%。
那么,地中海饮食为什么能改善情绪呢?
肠道菌群在其中发挥了关键的中介作用。
基于目前的科学证据,我们给出以下改善情绪的饮食建议:
应该多吃的食物
– 各种颜色的蔬菜(每天至少500克)
– 新鲜水果(每天200-350克)
– 全谷物(燕麦、糙米、藜麦、全麦面包等)
– 豆类(黄豆、黑豆、红豆、鹰嘴豆、扁豆等)
– 坚果和种子(核桃、杏仁、亚麻籽、奇亚籽等,每天一小把)
– 富含脂肪的鱼类(三文鱼、鲭鱼、沙丁鱼、凤尾鱼,每周2-3次)
– 发酵食品(无糖酸奶、开菲尔、泡菜、纳豆等)
– 橄榄油(作为主要的烹饪用油)
– 香料(姜黄、生姜、大蒜、肉桂等)
应该少吃的食物
– 加工食品(薯片、饼干、方便面、火腿肠等)
– 含糖饮料(可乐、果汁饮料、奶茶等)
– 精制碳水化合物(白米饭、白面包、面条、糕点等)
– 油炸食品和高脂肪食物
– 加工肉类(培根、香肠、火腿等)
– 过量的酒精和咖啡因
西式饮食模式与认知功能下降和情绪症状风险增加密切相关,长期高脂高糖低纤维的饮食会显著降低菌群多样性,减少产丁酸菌,促进有害菌生长,导致肠漏和慢性炎症。
植物提取物
一些植物提取物、氨基酸、脂肪酸和矿物质也被研究用于缓解焦虑。不过,这类干预的证据强度差异很大,可以作为辅助性的情绪调节工具。
有较多小型人体研究支持的
★ Kava(卡瓦)
卡瓦是一种生长在南太平洋岛屿的植物,通常作为茶或补充品食用。在几项人体研究中,卡瓦被报道可改善焦虑、紧张、不安、失眠、睡眠质量和情绪状态。
在动物中,卡瓦的抗焦虑效果被报道相当强大,甚至可能与苯二氮卓类药物(一类常用治疗焦虑症的药物)的效果相媲美。
一项对多种草本抗焦虑药进行比较的研究得出结论,卡瓦在减轻焦虑方面可能比大多数其他草本补充剂更有效。
机制上,Kava 可能增强 GABA-A 受体活性,并影响去甲肾上腺素摄取,也就是说“降低神经兴奋性、增强抑制性神经传递”。
注:需要特别注意的是,Kava 曾被报道与肝毒性相关,尤其可能与其他药物或肝脏负担叠加,因此有肝病、饮酒较多或正在服药的人不应自行使用。
★ 薰衣草
人体研究中,薰衣草被报道可改善焦虑和睡眠质量。它不一定是直接治疗焦虑障碍,而可能是通过改善紧张感和睡眠质量,间接降低焦虑体验。
在动物研究中,薰衣草精油中的几种成分(芳樟醇、龙脑)被报道能略微增加抑制性神经递质GABA的活性,这可能是其所谓减缓焦虑效果的基础。
编辑
★ 银杏叶
银杏是一种药用植物,广泛应用于中医,用于抵消与年龄相关的认知衰退,以及其他传统用途。
一项针对107名人类的研究,每天补充240或480毫克银杏叶连续4周,被报告显著减轻焦虑症状(相比无效安慰剂治疗)。
银杏提取物也被报道能减轻老年患者的焦虑、抑郁和痴呆症状。
一些动物研究的早期证据表明银杏叶可能在大鼠中表现出某些抗焦虑特性。
注:需要注意的是,银杏可能影响凝血功能,正在使用抗凝药、抗血小板药、准备手术或有出血风险的人群,不应自行使用。
★ 洋甘菊
洋甘菊中含有黄酮类成分芹菜素。洋甘菊更接近温和的神经镇静和压力调节方向。
两项分别为57名和61名参与者的人体研究报告,洋甘菊提取物可降低轻度至中度的焦虑、抑郁和压力。
据报道,服用标准补充剂量的着皮生素能减轻焦虑,同时不引起类似镇静的副作用。
一些早期证据表明,芹菜素可能通过与GABA受体结合来增强GABA通讯(类似于苯二氮卓类药物的作用方式)。有报道称,它还可能抑制谷氨酸家族的NMDA受体。
注:需要区分的是,标准化洋甘菊提取物和日常饮用的洋甘菊茶并不等同,茶饮中的有效成分剂量通常更低,不能简单理解为“喝洋甘菊茶就能治疗焦虑”。
★ 柠檬香蜂草
柠檬香蜂草传统上常作为镇静类草本茶饮使用。
根据多项人体用户研究,300~1600毫克的柠檬香蜂草提取物补充剂在20名、18名、20名和20名参与者的人体研究中被报告能改善焦虑、压力、失眠、记忆、情绪和认知处理。
其主要活性成分之一是迷迭香酸,可能通过抑制 GABA 分解相关酶,间接提高 GABA 水平。由于 GABA 是大脑中最重要的抑制性神经递质之一,这一机制可以解释它为何可能带来放松和抗焦虑效果。
编辑
★ 紫色西番莲
紫色西番莲是一种原产于美国东南部的开花藤本植物。
一项针对18名广泛性焦虑症患者的早期研究结果表明,紫西番莲可能有助于减轻焦虑,类似于苯二氮卓类药物(一种常用于治疗焦虑及其他精神疾病的药物)。
另一项研究报告称,手术前补充紫色西番莲能减轻30名手术患者的焦虑。
一项纳入 30 人的双盲随机对照试验(DB-RCT),单次服用 5,000 毫克紫花西番莲可降低公众演讲后的心率;而连续 6 天服用 500 毫克,则被报告可在公众演讲任务期间降低血压。
机制上,动物研究提示它可能影响海马区 GABA-A 和 GABA-C 通路。整体来看,可以理解为“降低应激反应和生理唤醒”的辅助工具,但现有人体样本量仍偏小。
有初步人体研究但证据仍不足的
► 南非醉茄 / 印度人参
南非醉茄可能不是直接作用于某一个焦虑症状,而是通过降低慢性压力负荷来改善焦虑状态。
据报道,51名更年期综合征女性的研究中,南非醉茄可以减少情绪波动和焦虑,一些研究人员甚至提出,南非醉茄提取物可能有助于在传统的精神病学实践中治疗焦虑症。
动物研究还提示,它的抗焦虑作用可能与劳拉西泮类似。
其他研究报告称,在治疗焦虑和社交隔离诱导行为时,其作用类似于情绪稳定剂。
编辑
► 茶氨酸 / 绿茶
L-茶氨酸是一种存在于白茶、红茶和绿茶中的氨基酸,因其镇静效果广受推崇。
一些早期研究也支持这一点。例如,在两项分别包含 12 名和 14 名参与者的研究中,受试者在完成脑力任务后服用 L-茶氨酸。研究报告称,L-茶氨酸有助于缓解压力症状,同时还能降低心率和血压。
一项针对20名精神分裂症患者的研究(DB-RCT)报告每日补充L-茶氨酸能减轻焦虑,20名健康个体中也显示有促进放松的效果。
动物研究提示,L-茶氨酸可能提高 GABA、多巴胺和 5-羟色胺等神经递质水平。
► 积雪草
积雪草(Centella asiatica)是一种生长在南亚湿地的植物,传统上既被用作食用蔬菜,也被用作药用草本。
在一项安慰剂对照研究中,积雪草被报告可抑制 40 名健康成年人中的惊跳反应。
一些大鼠研究报告称,积雪草及其主要成分积雪草酸(asiatic acid)可减少与焦虑相关的行为。
一项大鼠研究的早期证据提示,积雪草可能通过激活谷氨酸脱羧酶发挥作用。该酶能够提高大脑中的 GABA 水平。
注:证据有限但机制上值得关注,人体焦虑研究仍较少。
► 黄芩类草本
它们含有具有生物活性的黄酮类化合物,这类成分被认为具有较强的抗氧化作用。
一项小规模人体研究显示,与安慰剂相比,美洲黄芩被报告可减轻 19 名成年人的焦虑。
一些动物研究证据提示,补充中国黄芩可能有助于减少压力诱发的焦虑样行为,并降低血液中的皮质酮水平。
虽然这类草本中含有许多值得研究的不同化合物,但汉黄芩素(wogonin)被认为是中国黄芩中的主要活性黄酮。有研究报告称,它可减少小鼠的焦虑样行为,并增强 GABA-A 受体活性。
编辑
► 缬草
缬草(Valeriana officinalis)是一种开花植物,历史上曾用于香水制作,如今常以茶饮或根部提取物的形式作为补充剂使用。
根据一项初步人体研究,在 33 名健康个体中,每天两次补充 500 mg 缬草、持续 60 天,被报告可减轻焦虑、压力和抑郁。
一些动物研究也报告称,缬草可能有助于减少焦虑样行为。
机制上,缬草可能增强 GABA-A 信号,因此更接近“睡眠—镇静—焦虑缓解”路径。
注:由于它可能带来嗜睡,也可能与镇静催眠药、酒精或抗焦虑药叠加,不建议自行混用。
补充剂
► 5-羟色氨(5-HTP)
5-HTP 是一种天然存在的氨基酸。大脑会利用它来合成血清素,而血清素是一种神经递质,通常被认为与情绪调节密切相关。
一项针对 15 名年轻成年人的人体研究中,受试者因单恋而出现焦虑,连续 6 周补充 5-HTP 后,他们的焦虑有所减轻,这可能与血液中 BDNF 和血清素水平升高有关。
另一项人类研究报告称,仅一次200毫克的5-HTP剂量即可部分缓解24名惊恐障碍患者的惊恐发作。
注:需要强调的是,5-HTP 可能与 SSRIs、SNRIs、MAOIs 等抗抑郁药发生相互作用,如正在服用精神科药物请遵医嘱。
► 镁
镁与神经兴奋性、NMDA 受体、HPA 轴和肌肉紧张都有关。
一些病例研究报告称,开始补充镁后一周内,抑郁、焦虑和睡眠问题有所改善。
注:这些结果只基于少数个体使用者,仍需要在健康人群中开展更大规模的临床试验,才能确认这些效果。
一些研究人员认为,镁可能具有抗焦虑作用,这或许与它能够降低 HPA 轴的活性有关。HPA 轴是大脑中参与压力调节的重要系统之一。此外,镁还可能通过抑制 NMDA 受体发挥作用。
► 鱼油 / Omega-3 脂肪酸
Omega-3 脂肪酸主要包括 EPA 和 DHA,与炎症、神经可塑性和细胞膜功能密切相关。
在一项包含 49 人的研究中,Omega-3 脂肪酸水平较低与社交焦虑水平较高有关。
在一项针对 34 名健康人的研究中,每天补充 2.5 克 Omega-3 被报告可减轻焦虑症状,同时降低IL-6水平。IL-6 是一种重要的促炎性细胞因子。
另一项研究报告称,补充 3 克 Omega-3 可减轻 11 名物质滥用者的焦虑。
一项大鼠研究中,DHA(一种 Omega-3 脂肪酸)被报告可降低 TNF-α、IL-6 和一氧化氮合酶 的水平。这可能说明,DHA 的部分作用或许与减轻炎症有关。
其他动物研究报告称,EPA(另一种 Omega-3 脂肪酸)可能有助于增加海马体神经发生。
其他干预手段
除了上述主要方法,还有一些新兴的干预手段也在研究之中,包括粪菌移植(将健康捐赠者的粪便菌群移植到患者肠道中)、后生元(益生菌的代谢产物或灭活菌体成分)、噬菌体疗法(利用噬菌体精准清除有害菌)、菌群定向培养(从患者自身肠道中分离有益菌,体外扩增后回输)等。这些技术目前大多还处于研究阶段,但未来可能会成为重要的治疗手段。
基于的研究探索和临床实践,不同人群的菌群组成、肠脑轴功能以及对干预的反应存在较大的差异。因此,基于微生物组的焦虑干预需要个性化。
儿童与青少年:发育中的菌群-肠脑轴
儿童和青少年时期是大脑发育的关键时期,也是肠道菌群建立和稳定的关键时期。研究表明,生命早期的菌群失调(如剖腹产、配方奶喂养、抗生素使用等)与儿童和青少年时期的焦虑、抑郁、自闭症、注意力缺陷多动障碍(ADHD)等精神疾病风险升高密切相关。
对于儿童和青少年的焦虑干预,菌群-肠脑轴具有特别重要的意义:预防优先、早期干预效果更好、安全性更高。当然,儿童和青少年的菌群干预也需要特别注意安全性和适宜性,剂量需要根据年龄调整,饮食干预需要考虑生长发育需求。
老年人:菌群衰退与情绪健康
随着年龄的增长,肠道菌群会发生一系列特征性的改变,被称为”菌群衰老”:菌群多样性显著降低、有益菌(如双歧杆菌属、产丁酸菌)丰度显著减少、潜在致病菌丰度增加、菌群的代谢功能下降,短链脂肪酸产生减少。
菌群衰老与老年人的多种健康问题密切相关,包括免疫功能下降、炎症水平升高、认知功能衰退、虚弱等。同时,也与老年人的焦虑和抑郁风险升高密切相关。65岁以上老年人中,焦虑障碍的患病率也在上升。
对于老年人的焦虑干预,重点包括:增加膳食纤维和发酵食品的摄入、适当补充益生菌、规律运动、社交活动、避免不必要的药物使用。
共病躯体疾病患者:特殊考虑
焦虑障碍常常与多种躯体疾病共病,尤其是胃肠道疾病、自身免疫病、代谢疾病等。
肠易激综合征(IBS)
一定比例IBS患者伴有焦虑或抑郁症状,而焦虑反过来又会加重IBS症状,形成恶性循环。菌群干预对IBS患者具有双重益处——既可以改善胃肠道症状,又可以改善焦虑情绪。
炎症性肠病(IBD)
IBD患者的焦虑和抑郁患病率高于健康人。这些患者存在严重的菌群失调,改善菌群不仅有助于控制肠道炎症,也有助于改善情绪症状。
肥胖和代谢综合征
肥胖和代谢综合征患者的焦虑和抑郁风险显著高于正常体重人群。同时,肥胖人群通常伴有显著的菌群失调。对于肥胖伴焦虑的患者,菌群干预同样具有双重益处。
性别差异:为什么女性更容易焦虑?
焦虑障碍存在显著的性别差异——女性的患病率是男性的2倍左右。这一差异的原因是多方面的,包括激素、社会心理因素、遗传等。近年来的研究发现,肠道菌群的性别差异可能也是其中一个重要的原因。
肠道菌群中含有大量的β-葡萄糖醛酸酶,可以将结合态的雌激素重新转化为活性态的游离雌激素,增加体内的雌激素水平。这一过程被称为“雌激素的肠肝循环”。菌群失调时,β-葡萄糖醛酸酶活性改变,会影响雌激素的正常代谢,导致雌激素水平异常。
编辑
雌激素可以通过多种途径影响大脑功能和情绪:它可以调节5-羟色胺、多巴胺等神经递质的合成和代谢,可以调节HPA轴的活性,可以影响神经可塑性和炎症反应。因此,菌群失调导致的雌激素代谢异常,可能是女性更容易患上焦虑和抑郁的重要原因之一。
这也解释了为什么女性在一些特殊的生理时期,如经前期、产后、更年期,更容易出现情绪问题。对于女性的焦虑干预,需要特别考虑激素与菌群的相互作用。
尽管微生物-肠脑轴的研究已经取得了很大的进步,但是这个领域仍然非常年轻,还有很多未知的问题和挑战等待我们去解决。目前大多数研究的样本量还不够大,方法异质性较高,因果推断仍然存在困难,动物到人的转化也存在鸿沟。
客观地说,基于菌群的焦虑干预距离真正成为常规临床治疗手段,可能还需要几年甚至更长的时间。不过,这并不意味着我们现在什么都做不了。恰恰相反,基于现有的证据已经足够支持我们在日常生活中做出一些改变,来改善我们的菌群和情绪。
最后,想给给读者一些实用建议
基于目前的科学证据,我们提出以下几点实用建议:
1
优先调整饮食
这是最重要、最有效、也最安全的干预手段。饮食调整不需要完美,只需要开始,哪怕只是每天多吃一份蔬菜,或者每周多吃一把坚果,都会对你的菌群和健康产生积极的影响。
2
谨慎选择益生菌
如果你想尝试益生菌,请注意以下几点:
– 选择有临床研究证据支持的菌株,而不是随便买。
-基于自己的肠道菌群构成和菌群状态选择合适的益生菌。
– 注意活菌数量,一般建议每天至少摄入10⁹-10¹⁰ CFU
– 选择靠谱的品牌,注意产品的保质期和储存条件
– 坚持服用4-8周,菌群的改变需要时间
– 如果服用后出现严重的胃肠道不适,应该停止使用并咨询医生
需要特别提醒的是:益生菌不是万能药,不能替代正规的心理治疗和药物治疗。如果你患有严重的焦虑障碍,一定要首先寻求专业精神科医生和心理医生的帮助。
3
改善生活方式
除了饮食,很多其他的生活方式因素也会影响肠道菌群和情绪:
– 规律运动:运动可以显著增加菌群多样性,促进有益菌生长,同时本身就是有效的抗焦虑手段;
– 充足睡眠:睡眠不足会严重破坏菌群平衡,增加炎症水平,加重焦虑症状;
– 压力管理:长期压力会导致菌群失调,而菌群失调又会加重压力反应,形成恶性循环。学习冥想、深呼吸、正念等压力管理技巧,打破这个恶性循环;
– 接触自然:多去户外,接触土壤和植物,可以增加环境微生物暴露,改善菌群多样性;
– 避免不必要的抗生素:抗生素会严重破坏肠道菌群,除非医生认为确实必要,否则不要随意使用。
4
关注自己的肠道感受
注意观察什么食物让你感觉舒服,什么食物让你感觉不舒服。每个人的菌群都是独特的,没有一种饮食适合所有人。学会倾听你身体的声音,找到最适合你自己的饮食和生活方式。
5
寻求专业帮助
如果有严重的胃肠道问题或者情绪问题,要寻求专业医生或专业的检查,包括消化、精神、营养等相关的检查和咨询等。菌群干预可以作为辅助治疗手段,但不能替代正规的医学治疗。
肠道菌群——心理健康的新边疆
一个多世纪前,Sigmund Freud 创立并发展精神分析学时,人们开始尝试从童年经验、潜意识冲突和内在心理世界中理解精神痛苦。
约七十年前,第一代抗抑郁药的出现,又让我们看到神经递质、神经环路和大脑生物学在情绪障碍中的重要作用。
今天,随着微生物—肠—脑轴研究的不断深入,我们对焦虑、抑郁等精神健康问题有了更加立体的认识:情绪并不只是“大脑内部”的事件,它也与免疫、代谢、内分泌、肠道屏障以及数以万亿计的肠道微生物密切相关。
这不是对过去理论的简单否定,而是一次重要的拓展。我们越来越清楚地看到,大脑并不是孤立运行的指挥中心,而是与全身各系统持续对话的复杂网络。精神健康也不应被简单归为心理问题或大脑问题,而应被理解为心理、神经、免疫、代谢、环境和生活方式共同作用的结果。肠道菌群正是这个复杂系统中一个重要而活跃的参与者。
编辑
微生物—肠—脑轴的研究,为焦虑、抑郁和压力相关问题的预防与干预提供了新的思路。合理饮食、充足睡眠、规律运动、压力管理,以及在专业指导下使用益生菌、益生元或其他微生态干预方式,未来都可能成为精神健康综合管理的一部分。但我们也需要保持科学的谨慎:肠道菌群不是解释一切的万能答案,菌群干预也不能替代规范的心理治疗、药物治疗和医学评估。
对行业而言,肠道菌群研究最大的价值,不在于制造新的概念热潮,而在于推动我们以更系统、更精准、更个体化的方式理解人体健康。未来真正有价值的微生态产品和干预方案,必须建立在高质量临床证据、精准的检测结果、清晰作用机制和真实人群获益之上。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Xiong RG, Li J, Cheng J, Zhou DD, Wu SX, Huang SY, Saimaiti A, Yang ZJ, Gan RY, Li HB. The Role of Gut Microbiota in Anxiety, Depression, and Other Mental Disorders as Well as the Protective Effects of Dietary Components. Nutrients. 2023 Jul 23;15(14):3258.
Butler, M.I., Bastiaanssen, T.F.S., Long-Smith, C. et al. The gut microbiome in social anxiety disorder: evidence of altered composition and function. Transl Psychiatry 13, 95 (2023).
Butler, M.I., Kittel-Schneider, S., Wagner-Skacel, J. et al. The Gut Microbiome in Anxiety Disorders. Curr Psychiatry Rep 27, 347–361 (2025).
Ding, H. “Gut microbiota and anxiety: an exploration of key findings. J Depress Anxiety.” 2017
Lan, J., Wang, J., Huang, S. et al. Neuropeptide SP protects against colitis and linked anxiety-like behavior through the putative roles of gut microbiota and metabolite inositol. Nat Commun 17, 295 (2026).
Shen H, Wang SY, Zhao YY, Zhou JL, Zhao J and Zhu WK (2026) Brain-gut-microbiota axis: a review on the bidirectional regulatory mechanisms between gut microbiota and brain and their disease interactions. Front. Microbiol. 17:1768891.
Kumar, Akash, et al. “Gut microbiota in anxiety and depression: unveiling the relationships and management options.” Pharmaceuticals 16.4 (2023): 565.
karger.com/books/book/382/chapter/5564732/Is-Anxiety-Associated-with-the-Gut-Microbiota
selfhacked.com/blog/natural-treatments-anxiety/
Cao, Y., Cheng, Y., Pan, W. et al. Gut microbiota variations in depression and anxiety: a systematic review. BMC Psychiatry 25, 443 (2025).
Li, Jianbing, et al. “Association between gut microbiota and anxiety disorders: a bidirectional two-sample mendelian randomization study.” BMC psychiatry 24.1 (2024): 398.
谷禾健康
川崎病 (KD) 是一种急性、免疫介导的血管炎,也是儿童获得性心脏病的主要原因。其最早由日本儿科医生川崎富作于1967年首次报告,此后全球六十多个国家相继发现病例。尽管临床诊治水平不断进步,但川崎病的病因至今仍未完全阐明。它不像普通感染那样有明确的病原体,也不像自身免疫病那样有清晰的自身抗体——它更像是一个由遗传易感性、环境触发因素和免疫异常反应共同编织的复杂谜团。而正是这种复杂性,使得川崎病在诊断、治疗和预后管理上始终面临诸多挑战。
更令人忧心的是,川崎病对儿童心脏的危害常被低估。若不及时治疗,约25%的患儿会出现冠状动脉异常,包括冠状动脉扩张和冠状动脉瘤,严重者可导致心肌缺血甚至心肌梗死。即使急性期症状消退,曾经出现冠状动脉损伤的患儿仍需长期甚至终身的心脏随访。这意味着,幼年一次发病,可能对其一生的心血管健康造成深远影响。
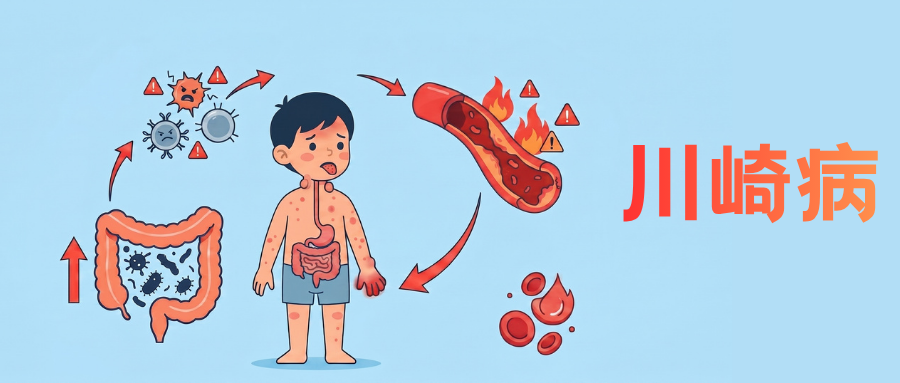
近年来,一个长期被忽视却逐渐浮出水面的关键角色——肠道菌群,正为理解川崎病发病机制提供新视角。研究显示,川崎病患儿急性期常出现明显菌群失衡:产短链脂肪酸的有益菌减少,条件致病菌增多,肠道屏障受损,微生物产物入血并放大全身炎症反应。更重要的是,这种失衡不仅与疾病进展相关,还可能影响IVIG治疗反应和冠状动脉损伤风险。肠道菌群正从“旁观者”转变为川崎病发生发展的参与者和潜在干预靶点。
本文将系统梳理川崎病从基础认知到前沿探索的完整知识脉络,首先初步介绍了川崎病的定义、病理特征、流行病学特点及风险因素,帮助读者建立基础认知。
其次整理了现有传统的川崎病治疗方法,包括静脉注射免疫球蛋白(IVIg)联合阿司匹林、糖皮质激素、IVIG抵抗补救方案及冠状动脉损伤后的抗栓治疗,呈现现有治疗的优势与局限。
然后揭示了患者肠道菌群失调的特征,短链脂肪酸不足、肠屏障受损、微生物产物易位与免疫炎症放大之间的关联,揭示其潜在致病机制。
最后,肠道微生物组作为川崎病的治疗靶点,将展望以微生态重塑为核心的干预新方向,从益生菌补充、益生元干预、粪菌移植到饮食调节,逐一分析各类策略的作用机制、现有证据及临床转化前景,为川崎病的精准治疗开辟新的思路。
什么是川崎病?
川崎病是一种主要发生在儿童(尤其是5岁以下)的急性全身性血管炎。可以把它理解为:孩子的免疫系统“被错误激活”,去攻击自身血管(尤其是中等大小动脉)的一种炎症性疾病。
编辑
★其中最关键的一点是:
它最容易损伤“冠状动脉”(给心脏供血的血管),这也是为什么川崎病被认为是:儿童中最常见的获得性心脏病原因之一。
注:川崎病(KD)最早由日本儿科医生川崎富作于1967年发表报告。1970年,在对10例诊断为KD后突发性心脏死亡的尸检后,这些心脏后遗症被记录下来。日本以外首次报告的病例出现在1970年代初的夏威夷;此后,全球60多个国家相继报告了KD病例。
川崎病有哪些症状及危害?
川崎病的诊断目前主要依赖临床表现,其经典特征可以归纳为“一加五”模式。
✅ 必备条件
“一”是指必备条件——患者主要表现为持续5天以上的高热(体温一般在39~40℃),且抗生素治疗无效。这是所有川崎病患儿共同的核心表现。
✅ 常见五大表现(满足其中4条即可高度怀疑)
1.双侧结膜充血:眼睛红,但没有分泌物。
2.口腔和嘴唇改变:
-嘴唇干裂、发红;
-“草莓舌”(舌头红、乳头突起)。
3.皮疹:全身性、多样性皮疹。
4.四肢改变:
-手脚红肿;
-恢复期出现指尖脱皮。
5.颈部淋巴结肿大。
与川崎病相关的变化
编辑
doi: 10.1161/ATVBAHA.124.321201.
✅ 川崎症在不同阶段表现出不同症状
川崎症按病程可为四期,不同阶段会有不同的症状:
•Ⅰ期,急性期:通常病程≤10天,临床表现为发热、结膜充血、皮疹、口腔病变、淋巴结肿大。
•Ⅱ期,亚急性期:病程在12~28天,表现为烦躁、脱皮,心脏表现如心包积液、房室瓣返流、心力衰竭、冠状动脉瘤形成等。
•Ⅲ期,恢复早期:病程在第28~45天,上述各种临床表现逐渐消失。
•Ⅳ期,恢复晚期:数月~数年,患儿大多已恢复正常,部分伴有心脏病变,如心电图异常、心律失常、心脏扩大,甚至缺血性心肌病、心功能不全。
✅ 川崎症的长期危害也很大
然而,川崎病真正的威胁远不止于这些表面症状。最核心、最严重的危害在于冠状动脉损伤。如果不及时治疗,约25%的患儿会出现冠状动脉异常,包括冠状动脉扩张和冠状动脉瘤(CAA)。冠状动脉瘤一旦形成,可能导致心肌缺血,甚至引发心肌梗死。
是的,儿童同样可能发生心梗——并显著增加猝死风险。
除此之外,由于川崎病本质上是一种全身性血管炎,它还可能波及心脏本身(引起心肌炎、心包炎)、消化系统(导致腹痛、呕吐),以及少见的神经系统损伤。
更值得警惕的是,即使急性期症状消退,曾经出现冠状动脉损伤的患儿仍需要长期、甚至终身的心脏随访,以监测潜在的心血管并发症。
川崎病的流行病学
川崎病是一种全球分布但发病率差异极大的儿童血管炎。近年来呈现:
川崎病有非常明显的流行病学特征,包括以下几点:
(1)地区差异(显著特征)
川崎病在不同地区发病率差异极大(可相差数倍):
• 东亚地区(高发区):持续上升、并存在流行高峰。
• 北美与欧洲(中低发区):亚裔儿童发病率显著更高。
• 其他地区:非洲、南美报道较少,全球总体发病趋势正在被越来越多识别。
(2)人群分布特征
• 年龄分布(极其典型):80–90%发生于5岁以下儿童,高峰年龄为6个月~4岁。(<6个月少见(可能受母体抗体保护),5岁后也明显减少)
• 性别差异:男孩发病率高于女孩,比例约为1.5:1。
• 种族/遗传背景:高风险人群为日本人、韩国人、中国人等亚洲人及亚裔后代(无论居住地)。说明遗传易感性在发病中起核心作用。
(3)时间分布特征
• 明显的季节变化:高发季节为冬季和早春;晚夏和秋季病例较低。
• 流行波动:周期性流行高峰,类似病毒传播的“波浪式模式”。
川崎病的风险因素
川崎病的本质是免疫介导的全身性血管炎,其核心病理过程是免疫系统对冠状动脉等血管壁的异常攻击。这些特征并不是孤立的,它们共同指向一个核心结论:“感染触发 + 遗传易感 + 免疫异常”三者共同作用的结果。导致疾病发生的风险因素主要有以下几种:
(1)遗传易感性(最强风险因素)
该疾病存在一定的家族聚集现象,在部分家庭中可见多名成员先后发病。同时已发现多个相关的易感基因位点(SNP),提示遗传因素在发病中具有重要作用:
(2)年龄因素
高风险:6个月–5岁。
可能原因:免疫系统尚未成熟、初次暴露病原体。
(3)性别因素
男性风险更高
可能原因:
(4)感染暴露
可能相关:
(5)种族与地理因素
日本、韩国、中国等亚洲人群风险较高,即使迁移仍保持高风险。
(6)季节与环境因素
冬春高发
可能相关因素:
(7)肠道菌群失衡(新兴风险因素)
研究发现,川崎病患者中:
注:肠道菌群与川崎病的关联将在后文进一步详细阐述。
(8)免疫状态异常
包括:
这些因素都可能会影响川崎病的发生。
本章小结
综上所述,川崎病是一种以儿童为主的免疫介导性全身血管炎,核心在于对冠状动脉的损伤,严重时可导致冠状动脉瘤、心肌缺血甚至心肌梗死,是儿童获得性心脏病的重要原因之一。
该病具有明显的年龄集中性(多见于5岁以下)、性别差异(男多于女)、种族倾向(亚裔高发)及季节性与流行波动特点。综合现有研究,川崎病的发生可归因于感染触发、遗传易感与免疫异常三者共同作用,其中遗传背景、年龄、性别、感染暴露及环境因素等均为重要风险因素,近年来肠道菌群失衡也被认为可能参与其发病过程。
整体而言,川崎病是一种多因素共同驱动的复杂免疫相关疾病,其早期识别与干预对于预防严重心血管疾病后果至关重要。
川崎病作为一种病因尚未完全明确的儿童急性系统性血管炎,其核心特征是异常激活的免疫反应及由此引发的血管内皮损伤。然而,一个长期未被充分重视却逐渐浮出水面的关键问题是:这一过度炎症反应”究竟由何触发,又如何被持续放大?
近年来,随着检测技术和微生态研究的发展,肠道菌群逐渐被认为是连接环境因素与宿主免疫反应的重要桥梁。越来越多证据表明,川崎病患儿存在显著的肠道菌群失衡,这种改变不仅体现在菌群组成的重塑,更涉及代谢功能紊乱及免疫调控异常,并与疾病的炎症程度、冠状动脉损伤以及IVIG治疗反应密切相关。因此,肠道菌群很可能并非单纯的“旁观者”,而是在川崎病的发生、发展乃至预后过程中发挥着主动而复杂的调控作用。
肠道微生物组与川崎病之间的潜在关联
编辑
doi: 10.1080/17460913.2025.2469432.
基于此,深入探讨肠道菌群在川崎病中的具体作用机制,对于理解其发病本质并寻找新的干预靶点具有重要意义。
川崎病中的肠道微生物失调
急性期川崎病(KD)患儿普遍存在肠道菌群α-多样性(丰富度与均匀度)显著降低及菌群结构失衡,典型表现为”产短链脂肪酸有益菌减少,条件致病菌过度增殖“的双重偏移。
编辑
doi: 10.1161/ATVBAHA.124.321201.
(1)产丁酸盐的菌属普遍降低:
• Faecalibacterium(特别是 F. prausnitzii):肠道中最主要的产丁酸盐菌之一;许多研究均证实其在川崎病(KD)急性期显著下调。其减少导致抗炎能力下降、肠道屏障受损。
• Ruminococcus 与 Roseburia:均为重要的产丁酸菌,负责维持紧密连接蛋白表达并调节Treg/Th17平衡;Ruminococcus在急性期减少,非急性期可回升。
• Clostridium(能产SCFA的梭菌簇)和Blautia:同样被发现在急性期丰度降低。
(2)经典的益生菌和保护性菌群减少:
• Bifidobacterium(双歧杆菌)和 Lactobacillus(乳杆菌):这两种最典型的益生菌在急性期丰度下降,这削弱了肠道黏膜屏障的保护功能。
• Akkermansia muciniphila(阿克曼氏菌):显著减少,该菌负责分解肠道黏液层,它的减少意味着黏液层的更新和维护可能受阻,屏障功能受损。
• Bacteroides(拟杆菌属):整体丰度下降,特别是其中的 Bacteroides thetaiotaomicron、B.uniformis 和 B. ovatus 等产SCFA的菌种。
注:值得注意的是,B. thetaiotaomicron 的减少被发现与IVIG耐药及心脏并发症风险增加相关。
川崎病肠道微生物组组成及关键代谢产物
编辑
doi: 10.1007/s00431-026-07008-z.
(3)潜在致病菌和条件致病菌大量增殖:
与有益菌减少相对应,多种条件致病菌在川崎病急性期呈现过度富集,可能通过超抗原、毒力因子或促炎代谢产物加剧全身炎症:
• Enterococcus(肠球菌属,特别是E.faecalis):在几乎所有研究中都显示急性期显著增高,并且其丰度与体内炎症标志物白细胞介素-6(IL-6)的水平呈正相关。此外,它还被认为与IVIG耐药有关。
• Streptococcus(链球菌属):其多个菌种在急性期丰度升高,它们可能通过产生超抗原,非特异性地过度激活T细胞,从而引爆全身性的免疫风暴。
• Staphylococcus(葡萄球菌属)、Helicobacter(螺杆菌属)、Acinetobacter(不动杆菌属)的丰度也在急性期有所增加,共同加剧了炎症反应。
• Fusobacteria(梭杆菌属)和 Shigella(志贺氏菌属)也被发现与川崎病的发生有关。
肠道菌群相关代谢物的变化及影响
川崎病(KD)急性期最关键的代谢物改变是短链脂肪酸(尤其是丁酸盐)显著下降,其他代谢轴亦有变化。
(1)短链脂肪酸(SCFA)减少
变化趋势: 实测显示KD患儿粪便丁酸盐浓度显著降低,乙酸盐、丙酸盐、乳酸盐在部分研究中相近或轻度下降;动物模型(CAWS诱导)亦示三种SCFA均减少。
丁酸盐是结肠上皮细胞主要能量源,可上调Occludin/Claudin等紧密连接蛋白;促进CD4⁺FoxP3⁺ Treg分化、抑制Th17分化;抑制NLRP3炎症小体及NF-κB/MAPK通路。
川崎病中缺失丁酸盐会导致:
•Treg发育受阻 → Th17/Treg失衡偏向促炎方向;
•肠道通透性升高 → 微生物产物(LPS等)入血;
•巨噬细胞MKP-1下调 → MAPK通路持续活化 → TNF-α、IL-1β、IL-6升高 → 冠脉血管炎。
(2)其他潜在代谢变化
•LPS(脂多糖)易位增加: 因”肠漏”发生,革兰阴性菌LPS进入循环 → 经TLR4-MyD88激活下游炎症通路。
•胆汁酸代谢改变: 部分研究示胆酸代谢通路差异,阿司匹林可通过P. goldsteinii / 7-keto-LCA影响肠上皮修复,但KD中直接数据有限。
血清免疫球蛋白下降: KD急性期肠道来源IgA、IgG水平下降,提示肠黏膜免疫功能障碍,削弱对共生菌/致病菌的管控。
肠道菌群影响川崎病的具体机制
根据现有文献,肠道菌群影响川崎病的具体机制可概括如下:
①菌群失调与短链脂肪酸匮乏
遗传易感 + 早期环境(感染触发、抗生素暴露、喂养方式)→ 急性期川崎病特有菌群失调 → 产 SCFA 菌(Faecalibacterium、Roseburia 等)锐减 → 粪便丁酸盐等 SCFA ↓
②肠道屏障破坏
SCFA(尤其丁酸盐)不足 → 结肠上皮细胞能量危机 + 紧密连接蛋白(Occludin、Claudins、ZO-1)表达下调 + 黏蛋白层变薄(Akkermansia 少)→ 肠上皮通透性增加。
③微生物产物易位与免疫激活
肠道内条件致病菌超抗原(链球菌/金葡菌来源)或 脂多糖(LPS)穿越受损屏障入血/淋巴;
LPS → TLR4 → NF-κB/NLRP3 炎症小体激活;
超抗原 → 非特异性 TCR 交联(Vβ2⁺ T 细胞克隆扩增)→ 强烈T细胞活化。
肠道微生物群失调与川崎病的联系
编辑
doi.org/10.1038/s41592-025-02923-9
④系统性免疫放大:
在上述刺激下,机体进入持续的高炎症状态:
•IL-6、TNF-α、IL-1β、IFN-γ持续升高;
•中性粒细胞、单核/巨噬细胞被大量激活。
同时:
•炎症细胞从肠道相关淋巴组织(GALT)迁移至外周;
•形成全身免疫放大效应。
⑤血管内皮损伤
炎症因子作用下:
•ICAM-1、VCAM-1表达上调;
•内皮通透性增加;
促进炎症细胞黏附与浸润及内皮细胞激活。
此外,中性粒细胞早期浸润、巨噬细胞、T细胞持续参与,会导致中小动脉全层炎症。
传统川崎病疗法与肠道菌群间的联系
(1)静脉注射免疫球蛋白能帮助菌群复衡
多数研究显示 IVIG (静脉注射免疫球蛋白)治疗后,有益菌(Bifidobacterium、Lactobacillus、Roseburia、Bacteroides vulgatus)部分恢复,条件致病菌(Finegoldia、Enterococcus)下降,SCFA 合成通路上调——提示 IVIG 可能间接帮助菌群复衡,或菌群稳态影响 IVIG 疗效(Bacteroides thetaiotaomicron 低、E. faecalis 高与 IVIG 耐药相关)。
(2)阿司匹林也会影响菌群丰度和短链脂肪酸
尚无 KD 患儿直接数据;其他模型显示阿司匹林可改变菌群丰度(升 高Bifidobacterium、Lactobacillus、降低Fusobacterium、Enterococcus),在临床前研究中,阿司匹林给药降低了厚壁菌门与拟杆菌门 (F/B) 的比率并增加了特异性 SCFA 。
但长期/高剂量可致轻微胃肠黏膜损伤,推测在 KD 中可能参与微调菌群—需进一步验证。
(3)糖皮质激素会降低菌群多样性
动物/其他病种研究显示长期糖皮质激素(GC)降低菌群多样性、改变短链脂肪酸产生菌;但川崎病中GC作为补救/辅助治疗与菌群交互尚不明确。
(4)抗生素暴露可能增加川崎病风险
回顾性研究显示生命早期(<6~12 月)抗生素使用与 KD 发病风险增加相关——抗生素破坏婴幼儿菌群建立,可能导致 SCFA 产生菌定植不足,构成 KD 易感背景。
本章小结
川崎病表现出典型的肠道菌群失调特征,即短链脂肪酸(SCFA)产生菌减少而条件致病菌增加,进而导致丁酸盐等抗炎代谢物不足,肠道屏障受损及通透性升高,促进微生物产物入血,并诱导Th17/Treg免疫失衡,最终放大全身炎症反应并加重冠状动脉损伤。
另一方面,标准治疗手段,尤其是静脉注射免疫球蛋白(IVIG),在一定程度上可促进肠道菌群结构的恢复与重建,而早期不合理或过度使用抗生素则可能进一步推动易感性菌群的异常偏移,加剧菌群失衡状态。
川崎病作为一种以全身性血管炎为特征的儿童疾病,其治疗策略始终围绕炎症控制与心血管保护展开。随着临床研究的不断深入,已逐步形成较为规范的传统治疗体系,并在降低严重并发症方面取得显著成效。
然而,在实际临床应用中,不同患儿的治疗反应及预后仍存在一定差异,提示该领域仍具有进一步优化与发展的空间。基于此,有必要对当前传统治疗方法及其特点进行系统梳理与分析。
1
静脉注射免疫球蛋白(IVIg)
适用对象:所有确诊或高度疑似川崎病患儿,争取在发热 ≤10 天内治疗。
川崎病最核心、最关键治疗,所有指南一致推荐。
✔优点:
•显著降低冠状动脉损伤:从15–25%下降至3–5%;
•起效快:多数患儿在24–48小时内退热;
•广谱免疫调节作用:抑制炎症因子(IL-1、TNF-α等)、调节T细胞、B细胞功能;
•安全性总体较好(临床经验丰富)。
✘局限性与缺点:
•约10%–20%患者无反应(IVIg-resistant),此类患者冠脉瘤风险显著升高;
•输注相关不良反应:发热、寒战、皮疹、过敏性休克(罕见);快速输注增加风险。
•作用机制尚未完全阐明(推测为 Fc 受体阻断、细胞因子中和、病原体特异性抗体)。
•费用高、资源依赖强:成本较高、依赖血制品供应。
2
阿司匹林(Aspirin)
阿司匹林是治疗川崎病儿童的关键药物。中剂量阿司匹林(30~50 mg/kg/天)在急性期发挥抗炎作用,而小剂量阿司匹林(3~5 mg/kg/天)在亚急性期发挥抗血小板作用,从而预防冠状动脉血栓形成。
✔优点:
•抗炎(高剂量)及抗血小板(低剂量)双重作用,符合 KD 急性期炎症 + 高凝状态病理生理;
•使用方便、成本低;
•在预防血栓方面作用明确。
✘局限性与缺点:
•高剂量时可能引起胃肠道刺激、Reye 综合征风险(尤其在病毒感染如流感/水痘时需暂停);
•出血风险(尤其联用其他抗凝药时);需根据肝功能、尿酸调整;
•不同国家对高剂量持续时间(至退热48h vs 至病程第14天)尚无统一标准。
3
糖皮质激素—联合辅助治疗
适用对象:经Kobayashi或Egami评分判定的IVIg 耐药高危患者,非高危者不常规推荐。
✔优点:
•强效抗炎作用;
•对IVIG抵抗患者有效;
•可缩短发热时间(部分研究支持)。
✘局限性与缺点:
•对冠状动脉保护作用不一致;
•可能存在副作用:包括免疫抑制、血糖升高、感染风险增加;
•使用时机存在争议:是早期联合用?还是仅用于难治?
4
IVIG抵抗病例的治疗
定义:首剂静脉注射免疫球蛋白(IVIg)(2g/kg)后≥36h 仍发热(≥38℃)且 CRP 未降。
(1)第2剂(或第3剂)IVIg
用法:再次给予2g/kg IVIg,品牌通常不变。
(2)静脉甲泼尼龙脉冲
用法:30mg/kg/日×1–3天(多在二次 IVIg 失败后),可续以口服激素逐渐减量。
(3)英夫利昔单抗(Infliximab,抗TNF-α)
用法:单次5mg/kg 静滴(通常在 1 剂 IVIg 无反应且考虑二次 IVIg 替代/联用时)。
(4)环孢素 A(Cyclosporine A)
用法:4–6 mg/kg/日分两次,根据血药浓度调整(谷值 60–200 ng/mL 或按中心方案),用至退热+CRP 正常,最长 2–3 周。
(5)低剂量甲氨蝶呤(极少用)
用法:10 mg/m² 每周口服,至 CRP 正常。
5
冠状动脉损伤后的抗栓治疗
本章小结
传统川崎病治疗以静脉注射免疫球蛋白(IVIG)联合阿司匹林为核心,该方案显著降低了冠状动脉并发症的发生率,是当前临床标准治疗。然而,该治疗体系仍存在一定局限性,包括约10%–20%的IVIG抵抗、对冠状动脉损伤预防不完全、治疗缺乏靶向性以及个体化管理不足等问题。
对于难治性病例,虽可采用重复IVIG、糖皮质激素及其他免疫调节治疗,但其疗效与长期获益仍存在争议。此外,抗血栓治疗及长期随访虽有助于降低严重心血管事件风险,但也增加了治疗复杂性与患者负担。总体而言,传统治疗虽显著改善预后,但仍有进一步优化和精准化发展的空间。
随着肠道微生物组在川崎病发生发展中的关键调控作用逐渐被揭示,其已从“相关因素”转变为具有潜在干预价值的治疗靶点。
当前研究表明,肠道菌群不仅参与炎症放大和免疫失衡过程,还可能影响静脉注射免疫球蛋白(IVIg)治疗反应及冠状动脉病变风险。因此,围绕微生态重塑的干预策略,正逐渐成为川崎病治疗领域的研究热点。这类策略旨在恢复菌群稳态、重建肠屏障功能并调节免疫反应,从而为传统治疗提供有益补充,并为改善预后开辟新的方向。
肠道微生物组的川崎病治疗干预措施
编辑
doi: 10.1007/s00431-026-07008-z.
益生菌帮助改善川崎病
益生菌对于调节肠道微生物群、提高整体免疫力、增加有益细菌丰度以及减轻与许多疾病相关的症状至关重要。
✅ 补充A.muciniphila减轻川崎病血管炎严重程度
在临床前模型中,研究已证实口服补充巴氏灭菌或活性的 A. muciniphila及 F. prausnitzii可减轻川崎病小鼠血管炎严重程度;类似地,口服巴氏灭菌的 A. muciniphila 或其外膜蛋白 Amuc_1100 亦具有保护作用。
其潜在机制可能与增强肠道紧密连接表达、降低全身免疫反应及增厚肠道黏液层有关。
✅ 补充丁酸梭菌降低炎症因子减轻冠状动脉病变
短链脂肪酸的产生源于膳食成分与肠腔内肠道微生物群之间复杂的相互作用。已证明在川崎病小鼠模型中给予丁酸梭菌可显著提高产生 SCFA 的细菌的流行率,并通过降低炎症标志物 IL-1β 和 IL-6 的水平来减轻冠状动脉病变 (CAL)的发展。
这为益生菌(丁酸梭菌)及其代谢产物补充剂(SCFA)调节川崎病患者肠道微生态提供了新的见解。
产生短链脂肪酸细菌对心血管疾病的影响
编辑
doi: 10.1161/ATVBAHA.124.321201.
多摄入益生元
益生元是不可消化的膳食纤维,可选择性刺激有益肠道微生物群的增殖并促进短链脂肪酸的合成。在成人临床研究中,一项临床试验表明,富含乙酰化和丁酰化淀粉的饮食可通过增加产生 SCFA 的细菌数量并提高循环乙酸盐和丁酸盐水平来显著降低高血压患者的血压。
✅ 低聚果糖可能成为免疫增强补充剂
低聚果糖 (FOS) 等益生元也观察到了类似的效果,它可以增强 SCFA 的产生、抑制病原菌并帮助维持肠道微生物稳态。通过益生元改变肠道微生物群可能是诱导保护性免疫反应的一种有前途的方法。在临床前研究中,在健康小鼠的饮食中添加果胶寡糖(POS)可以增强免疫球蛋白的产生,这与肠道细菌和醋酸盐的增加相关。这些发现表明,FOS 和 POS 可以作为川崎病患者潜在的免疫增强补充剂。
然而,益生元对川崎病的影响研究有限,有研究提出补充益生元可以改善川崎病患者的肠道免疫功能,从而提高治疗效果和疾病预后。
粪菌移植
✅ FMT可能在川崎病的治疗中发挥特定的作用
粪菌移植(FMT)有望直接重建紊乱的肠道微生态结构,将“有益菌减少、条件致病菌增加”的失衡状态恢复为相对健康的菌群组成,从而纠正川崎病急性期特征性的菌群紊乱。通过增强短链脂肪酸(SCFA)的合成,特别是丁酸盐的合成来降低肠道通透性,从而减轻疾病的严重程度,这有助于保持上皮屏障的完整性。
此外,由于肠道微生物群在调控系统免疫中具有核心作用,FMT还可能通过整体性免疫重塑,减轻血管炎症反应,从而在一定程度上降低冠状动脉损伤风险。
尽管如此,肠道微生物组在川崎病发病机制中的作用仍处于研究的初步阶段,FMT治疗急性期KD患者可能还不成熟,其治疗效果还不稳定。
饮食调节
饮食会影响肠道菌群的组成,进而影响全身疾病。
✅ 多酚和类胡萝卜素对川崎病有积极作用
β-胡萝卜素和虾青素等膳食类胡萝卜素已被证明可以促进肠道免疫系统的成熟并增加 IgA 的产生,这对肠道健康至关重要。此外,大豆异黄酮可以影响 Fcγ 受体功能,这对于 KD 的发病机制及其对 IVIG 治疗的反应具有重要意义。
饮食中的多酚和类胡萝卜素可能对川崎病具有积极作用,而高脂饮食则未显示出类似益处。
肠道微生物组作为川崎病的重要调控因素,正逐渐成为具有潜力的治疗靶点。以微生态重塑为核心的干预策略,包括益生菌、益生元、粪菌移植及饮食调节等,均可通过恢复菌群稳态、促进短链脂肪酸生成、增强肠道屏障功能及调节免疫平衡,从不同层面减轻炎症反应并可能降低冠状动脉损伤风险。
A. muciniphila、F. prausnitzii及丁酸梭菌等益生菌,以及低聚果糖、果胶寡糖等益生元均显示出一定的保护作用;粪菌移植则在重建整体菌群结构方面具有潜在优势;而富含多酚和类胡萝卜素的饮食亦可能带来益处。
然而,目前相关研究仍以临床前和探索性研究为主,证据尚不充分,未来仍需更多高质量临床研究以验证其安全性与有效性。
越来越多证据提示,川崎病并不只是血管和免疫系统“出了问题”,肠道菌群失衡、短链脂肪酸减少、肠屏障受损以及微生物代谢产物入血,可能共同参与了炎症放大和血管损伤过程。更重要的是,肠道微生态状态还可能影响IVIG治疗反应及冠状动脉病变风险,使其成为疾病进展的重要参与者。
当然,目前关于肠道微生物群与川崎病关系的研究仍处于探索阶段。无论是益生菌、益生元、饮食调节,还是粪菌移植等微生态干预策略,虽然展现出一定潜力,但距离真正进入标准化临床应用仍需更多高质量研究验证其有效性、安全性和适用人群。
不过可以确定的是,肠道微生物组正在为川崎病研究打开一条新的路径。未来,随着菌群检测、代谢组学和个体化医学的发展,我们或许能够更早识别高风险患儿,更精准预测治疗反应,并在传统治疗基础上,通过调节肠道微生态进一步改善疾病预后。
从“治炎症”到“调节微生态”,川崎病的治疗思路正在被重新拓展。肠道中的一个个微生物,也许正隐藏着改变儿童心血管健康结局的重要答案。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Mohsenzadeh A, Mohammadi A, Mohsenzadeh H, Kamali K, Moradi M, Ebrahimi N, Sheikhy M, Zabet AH, Mirheidari H, Bavari S, Elahi R. The gut microbiota and kawasaki disease: exploring the role of microbial dysbiosis and metabolites in pathogenesis and therapeutics. Eur J Pediatr. 2026 May 1;185(5):332.
Yang Q, Kang Y, Tang W, Li M, Zhao C. Interplay of gut microbiota in Kawasaki disease: role of gut microbiota and potential treatment strategies. Future Microbiol. 2025 Mar;20(4):357-369.
Jena PK, Arditi M, Noval Rivas M. Gut Microbiota Alterations in Patients With Kawasaki Disease. Arterioscler Thromb Vasc Biol. 2025 Mar;45(3):345-358.
Chen H, Liu H, Qiao L, Liu Y, Yu D, Wang Z, Wang T, Li W. The characteristics of the gut microbiota in patients with Kawasaki disease: a systematic review. Front Microbiol. 2025 Dec 18;16:1715478.
Chen J, Yue Y, Wang L, Deng Z, Yuan Y, Zhao M, Yuan Z, Tan C, Cao Y. Altered gut microbiota correlated with systemic inflammation in children with Kawasaki disease. Sci Rep. 2020 Sep 3;10(1):14525.
Shulman ST, Rowley AH. Kawasaki disease: insights into pathogenesis and approaches to treatment. Nat Rev Rheumatol. 2015 Aug;11(8):475-82.
Zeng Q, Zeng R, Ye J. Alteration of the oral and gut microbiota in patients with Kawasaki disease. PeerJ. 2023 Jul 10;11:e15662.
Han L, Liu X, Lan Y, Hua Y, Fan Z, Li Y. Metagenomic analysis demonstrates distinct changes in the gut microbiome of Kawasaki diseases children. Front Immunol. 2024 Jul 22;15:1416185.
Rife E, Gedalia A. Kawasaki Disease: an Update. Curr Rheumatol Rep. 2020 Sep 13;22(10):75.
Yang Q, Tang W, Ren J, Li M, Zhao C. Unveiling the gut-heart potential connection: microbiota’s role in kawasaki disease and coronary artery lesions. Front Cell Infect Microbiol. 2025 May 29;15:1560083.
McCrindle BW, Rowley AH, Newburger JW, Burns JC, Bolger AF, Gewitz M, Baker AL, Jackson MA, Takahashi M, Shah PB, Kobayashi T, Wu MH, Saji TT, Pahl E; American Heart Association Rheumatic Fever, Endocarditis, and Kawasaki Disease Committee of the Council on Cardiovascular Disease in the Young; Council on Cardiovascular and Stroke Nursing; Council on Cardiovascular Surgery and Anesthesia; and Council on Epidemiology and Prevention. Diagnosis, Treatment, and Long-Term Management of Kawasaki Disease: A Scientific Statement for Health Professionals From the American Heart Association. Circulation. 2017 Apr 25;135(17):e927-e999. doi: 10.1161/CIR.0000000000000484. Epub 2017 Mar 29. Erratum in: Circulation. 2019 Jul 30;140(5):e181-e184.
Dietz SM, van Stijn D, Burgner D, Levin M, Kuipers IM, Hutten BA, Kuijpers TW. Dissecting Kawasaki disease: a state-of-the-art review. Eur J Pediatr. 2017 Aug;176(8):995-1009.
Rowley AH, Shulman ST. The Epidemiology and Pathogenesis of Kawasaki Disease. Front Pediatr. 2018 Dec 11;6:374.
Yim D, Curtis N, Cheung M, Burgner D. Update on Kawasaki disease: epidemiology, aetiology and pathogenesis. J Paediatr Child Health. 2013 Sep;49(9):704-8.
谷禾健康
编辑
在人类肠道这个高度复杂的“微型生态系统”中,除了广为人知的细菌之外,还栖息着一类常被忽视却至关重要的微生物——古菌。
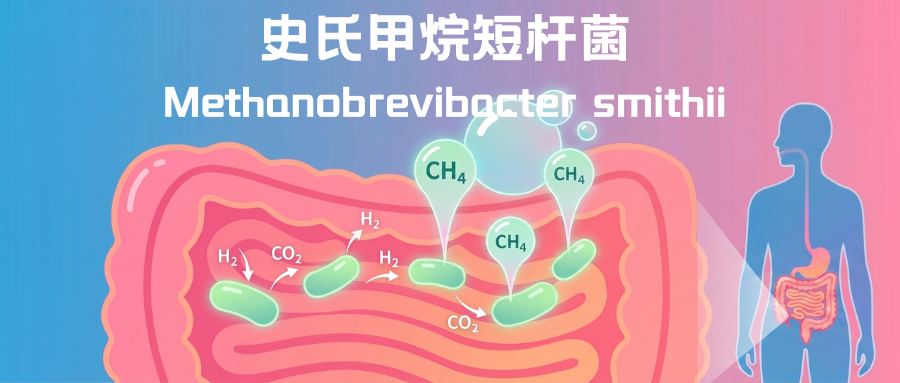
其中,Methanobrevibacter smithii(史氏甲烷短杆菌)作为人体肠道中最主要的产甲烷古菌,具有短杆/卵圆形、肽聚糖样细胞壁、丰富黏附蛋白等特征。它能通过消耗发酵细菌如Prevotella产生的氢气并生成甲烷,不仅维持了肠道微生态的代谢平衡,还在能量回收、菌群互作以及宿主健康中发挥着关键作用。
近年来,随着宏基因组学和代谢研究的推进,M.smithii 已从“沉默的共生者”转变为研究热点。该菌自生命早期定植并伴随终生,通过与细菌及宿主的多重互作调控能量代谢与疾病风险。在不同疾病中,其可能表现为“保护性减少”或“风险性增加”。目前,其在便秘型肠易激综合征、肥胖、炎症性疾病及结直肠癌中的潜在作用正逐步被揭示。
Methanobrevibacter smithii(史氏甲烷短杆菌)是人类肠道中最主要的产甲烷古菌,也是目前研究最深入的人体“古菌共生者”之一,其在能量代谢、肠道微生态和多种疾病中扮演重要角色。多项研究从形态学、基因组学、代谢特征和生态位等方面刻画了其“基本特性”。
1
分类学
史氏甲烷短杆菌(M. smithii)属于广古菌门、甲烷杆菌科 (Methanobacteriaceae),是人类肠道最优势的古菌代表,约占肠道古菌的 >90%。
2
细胞形态与结构
▸ 形态
编辑
▸ 细胞壁结构(关键差异)
▸ 特殊结构
提示:这些特征使其在免疫识别、抗性、进化上都不同于细菌。
3
生长环境
▸ 基本生理条件
为典型中温、专性厌氧、氢营养型产甲烷菌。
4
代谢能力
▸ 核心特征
其核心代谢途径是:
CO2+4H2→CH4+2H2O
•即利用H₂(由发酵细菌如 Bacteroides, Clostridium产生)还原 CO₂ 生成甲烷。
• 不能利用糖类、蛋白质等常见有机碳源,完全依赖 氢营养型代谢。
M. smithii产甲烷途径
编辑
doi: 10.1016/j.heliyon.2024.e36742.
也可利用:
▸ 清除氢气
这点极其关键,因为:
▸ 对短链脂肪酸的间接调控
通过“氢转移”
5
耐药性
▸ 对大部分抗生素耐药
古菌对多数抗细菌抗生素不敏感,如β-内酰胺类(如青霉素、头孢菌素,因缺乏细菌细胞壁合成靶点)、大环内酯类、氨基糖苷类、喹诺酮类。
▸ 有效药物
莫匹罗星(特异性抑制古菌异亮氨酰-tRNA合成酶)、部分硝基咪唑类(如甲硝唑,部分敏感,但易产生耐药)。利福昔明 + 新霉素(IMO常用)、甲烷抑制剂(研究中)。
!
提示
常规肠道菌群检测(细菌培养)可能会漏检,需特异性古菌PCR或宏基因组测序。
Methanobrevibacter smithii(史氏甲烷短杆菌)是人体内分布最广泛且最具代表性的产甲烷古菌,主要定植于胃肠道,尤其在结肠中丰度最高。
除肠道外,M. smithii 亦可在口腔、呼吸道及个别体液或组织样本中被检测到,提示其具有一定的跨部位分布潜力。
M.smithii在人类中的定植
编辑
doi: 10.1016/j.heliyon.2024.e36742.
▸ 胃肠道
目前关于M. smithii在肠道中的认识主要来源于粪便研究。
▸ 胃和小肠的环境不太利于M. smithii定植
实际上,胃、小肠和大肠在pH、氧分压、菌群组成及黏液厚度等方面存在显著差异,从而影响其定植。胃内强酸性环境(pH 2–3.5)、较高氧分压、低菌密度及薄黏液层均不利于M. smithii生长。
小肠中,随着从十二指肠到回肠pH升高(6至7.5)及氧分压下降,兼性厌氧菌(如肠杆菌科和链球菌科)逐渐占优势,而并非M. smithii的理想生态位。
▸ 结肠和直肠更适合M.smithii 定植
相比之下,结肠和直肠具备近中性pH(6.5–7)、强厌氧环境及较厚黏液层,更适合M. smithii定植,并支持其与拟杆菌科和瘤胃球菌科形成稳定的代谢网络。
▸ 口腔
M. smithii已在牙周病相关口腔样本中被分离鉴定。在对54份口腔样本进行气相色谱分析后,有20份检测到甲烷,其中3份通过间接免疫荧光和电子显微镜确认存在M. smithii。
▸ 吸烟者口腔中更容易存在M.smithii
对200份口腔样本(包括52名吸烟者和148名非吸烟者)的研究显示,32%样本检测到M. smithii 16S rRNA基因,其中吸烟者占73%。进一步通过针对mcrA基因的FISH检测,在阳性样本中有39.58%被确认,其中部分为M.smithii与M.oralis的共感染。对PCR阳性样本的培养共获得46例生长,其中包括一例同时分离出M. smithii的吸烟者口腔样本。
总体而言,这些结果表明吸烟与口腔中M. smithii的存在显著相关,提示其可能影响口腔甲烷古菌群落结构。
▸ 下呼吸道
M. smithii亦可在下呼吸道样本中检测到,包括痰液、支气管肺泡灌洗液和支气管抽吸液。通过PCR和RT-PCR扩增古菌及M. smithii的16S rRNA基因,在部分痰液和支气管肺泡灌洗样本中确认其存在。
进一步采用FISH结合共聚焦显微镜进行形态学分析,仅在一份支气管肺泡灌洗样本中观察到M.smithii,而痰液样本未检出阳性信号。
▸ 母乳
通过改进的DNA检测方法及抗氧化培养技术,研究在3份初乳和5份乳汁样本中成功分离出M. smithii。该菌分别通过培养和qPCR在38%(5/13)和29%(37/127)的母乳样本中被检测到,其存在与母体体重指数等代谢特征相关。
既往研究亦表明,母乳中含有多种源自母体肠道的微生物,且母亲与母乳喂养婴儿的肠道菌群具有显著重叠,提示包括M. smithii在内的肠道微生物可能经母乳传播。
总体而言,这些证据表明母乳喂养有助于关键共生菌的垂直传播,并在出生早期促进婴儿肠道微生物群的建立。
▸ M. smithii分布的时间和人群差异
根据文献数据显示,M.smithii在出生后1–2天即可在新生儿胃液和粪便中发现,可能通过母乳或母体来源实现早期定植;并且其在不同年龄、饮食结构及健康状态下,丰度呈动态变化。
▸ 不同地理环境和饮食会影响M. smithii丰度
中国 5 地区 792 名成人研究发现,地理位置是决定肠道古菌组成的主因,其次为城市化、饮食和民族;农村人群粪便中M. smithii 更丰富,饮用酥油奶茶与 M. smithii 升高相关。
而城市化会降低古菌多样性及古菌/细菌比值,M.smithii 减少伴随血清胆碱酯酶水平升高,与现代非传染性疾病上升趋势相呼应。
需要说明的是,M. smithii在有氧环境中的活动,如口腔、血液和母乳,取决于它找到无氧生态位或有利于其生存和潜在代谢活动的条件。例如,在口腔内,牙菌斑可以创造微环境,使M.smithii得以生存。在血液中,其存在通常表明异常状况,虽然可以检测到,但可能并非积极参与正常生理过程,而是参与病理状态。母乳中M.smithii的存在可能是短暂的,也可能是母体微生物群转移的一部分。
▸ 极高龄老人中M.smithii也比较丰富
编辑
影响因子:2.989
在19–109岁人群中,极高龄老人的高甲烷表型与 M. smithii 丰度增加相关,百岁老人的甲烷菌组成更接近年轻人,尤其表现为Methanobrevibacter smithii的回升。研究还揭示两种关键古菌(M.smithii与Ca.M.intestini)在不同年龄阶段的网络作用发生转变,并与产丁酸菌形成复杂共生关系,可能通过代偿机制维持肠道代谢与健康,从而与健康老龄化及长寿相关。
不同人群M.smithii的差异
编辑
▸ 与其它微生物的互作
M. smithii被揭示与细菌、真菌和病毒以及宿主均存在互作关系,构成了一个广泛的网络。
M. smithii及其微生物互作网络的图示
编辑
doi: 10.1016/j.heliyon.2024.e36742.
▸ 产氢气细菌能促进M. smithii的丰度
M. smithii与肠道细菌之间存在复杂的代谢互作。Bacteroides、Prevotella、Ruminococcus和Faecalibacterium等菌通过发酵产生氢气,为M.smithii进行产甲烷提供关键底物。
编辑
Villa R,et al.Trends in Microbiology.2025
在体外研究中,B. thetaiotaomicron产生的氢气和发酵产物可支持M. smithii生长。矛盾的是,这些发酵副产物的积累会扰乱B. thetaiotaomicron的代谢分泌模式,阻碍M. smithii的生长。
相比之下,Christensenella minuta产生氢气的能力更强,对M. smithii的代谢支持更为显著。进一步的体外培养实验表明,M. smithii可抑制硫酸盐还原菌(如脱硫弧菌科)的生长;当其活性被抑制时,这类菌群则显著增加,提示二者在氢气利用上存在竞争关系。
▸ M. smithii可增强部分真菌代谢酶活性
目前尚无关于M. smithii与人类真菌相互作用的研究,但其与瘤胃真菌的关系已有较多报道。M.smithii与Neocallimastix frontalis和Piromonas communis共培养时,可降低真菌对离子载体抗生素(如monensin和lasalocid)的敏感性,但在香豆素或对香豆酸存在时未表现出保护作用。
此外,与N. frontalis、P. communis和Sphaeromonas communis共培养可增强真菌代谢酶活性,促进木聚糖和纤维素发酵,增加乙酸、木糖和己糖的释放;与N. frontalis、Piromyces和Caecomyces共培养则可改善黑麦草及木质化细胞壁的降解。
相反,稻草发酵提取物中的土曲霉可抑制M. smithii生长及其甲烷生成,其机制可能与真菌分泌的洛伐他汀抑制参与甲烷生成细胞膜合成的关键酶(HMG-CoA还原酶)有关。
▸ M.smithii可能会被噬菌体感染
人类病毒组由多种栖息于人体内的病毒组成,参与调控健康、疾病及微生物间相互作用。在消化道中,病毒以尾部双链DNA噬菌体(Caudoviricetes)为主。最新生物信息学研究在多个人源M. smithii基因组中发现了嵌入的Caudoviricetes相关序列,提示该古菌可能受到此类噬菌体感染。
▸ 与人体的相互作用
▸ 影响肠道动力
甲烷在肠道中可能通过多种机制减缓肠蠕动,其作用途径尚未完全明确。现有研究推测,这一过程可能涉及对肠道平滑肌活动的直接影响,同时通过调节肠神经系统的信号传导改变蠕动节律,此外还可能通过气体信号分子的调控发挥作用。这可能导致便秘的发生。
▸ 影响能量代谢
甲烷相关微生物可通过多种途径影响宿主代谢,包括提高能量的获取与利用效率,同时改变短链脂肪酸(SCFA)的组成谱,并进一步调节脂质代谢过程。
▸ M.smithii会影响免疫反应
在人类中,对暴露于M. stadtmanae、M. smithii和M. luminyens的外周血单核细胞(PBMC)及单核细胞来源树突细胞的研究显示,这些古菌可诱导TNF-α和IL-1β等促炎细胞因子释放,并干扰moDC中抗菌肽基因的表达。然而,在Caco-2/BBe肠上皮细胞中未观察到类似反应,提示其识别主要发生于免疫细胞。
此外,小鼠吸入M. smithii可使骨髓来源树突细胞积累增加约10倍。由M. smithii脂质构建的“古菌体”在增强免疫应答方面优于传统脂质体。
Methanobrevibacter smithii是人类肠道中最常见的产甲烷古菌之一,在维持肠道微生态稳态与宿主代谢中发挥重要作用。然而,M. smithii的过度增殖或功能失衡也与多种疾病相关。
1
便秘为主的肠易激综合征中增加 ↑↑↑
▸ 最明确
编辑
影响因子:3.141
▸ M.smithii可能通过抑制肠道蠕动导致便秘
研究显示,肠易激综合征(IBS)患者的M. smithii数量显著高于健康对照,且在便秘型(IBS-C)中最为显著;其丰度与排便频率呈负相关,提示其可能通过抑制肠道蠕动促进便秘。
▸ M.smithii产生的甲烷还可能导致腹胀
此外,M. smithii负荷与呼气甲烷水平及腹胀症状密切相关,支持其在IBS发病机制中的重要作用。
2
肥胖患者中丰度变化
▸ 存在争议
编辑
影响因子:3.514
有研究发现,Methanobrevibacter smithii(史氏甲烷短杆菌) 在肥胖个体中呈现出丰度显著增加的趋势,并通过独特的“代谢协同”机制促进宿主能量吸收和体重增加。
其具体机制包括:
▸ 氢清除效应与能量增效
肠道发酵会产生大量氢气(H₂),积累的 H₂ 会抑制细菌的进一步发酵。而M.smithii利用H₂还原CO₂生成甲烷(CH₄),清除了肠道内的H₂。
H₂降低后,发酵细菌的代谢活性被“解锁”,能更高效地将复杂多糖分解为短链脂肪酸(SCFAs)。使得宿主可吸收的 SCFAs(能量来源)总量增加,导致“能量收获”过度。
▸ 部分新研究发现肥胖者中M.smithii减少
但也有一些新研究发现M.smithii在肥胖患者中丰度呈现下降趋势(基于meta分析结果的综合观察),并且与“瘦相关菌群”表现出共现关系,
因此,现在普遍共识认为M.smithii与肥胖之间的关系具有明显的情境依赖性特征。
3
在高注意力人群中更为丰富 ↑↑↑
编辑
影响因子:7.74
▸ M.smithii丰度较高与更好的注意力及认知相关
一项研究探讨了肠道古菌(尤其是产甲烷菌Methanobrevibacter smithii)与认知功能之间的关系,发现其丰度越高与更好的注意力、执行功能和认知灵活性显著相关,并在两个独立人群队列(n=125;n=942)中得到验证。
高丰度M. smithii个体具有独特的肠道菌群结构及代谢特征,表现为丁酸盐、组氨酸、苯丙氨酸和胆汁酸代谢增强,同时伴随更低炎症及改善的代谢状态。
粪菌移植实验进一步证明,这种微生物生态可改善小鼠认知灵活性和体重,提示古菌通过“肠-肌-脑轴”调控代谢与认知,具有潜在治疗价值。
4
炎症性肠病患者中减少 ↓↓↓
编辑
影响因子:2.914
▸ M.smithii对炎症性肠病具有一定的诊断价值
研究了肠道古菌Methanobrevibacter smithii在炎症性肠病(IBD)中的变化及其作为生物标志物的潜力。
研究发现,IBD患者粪便中M. smithii的丰度显著低于健康人群,提示其与疾病发生密切相关;此外,在疾病缓解期该菌数量高于活动期,说明其可能参与疾病状态调节;ROC分析进一步表明,M. smithii具有一定的诊断价值,可能作为区分健康肠道与IBD的重要微生物标志物。
5
结直肠癌患者中增加 ↑↑↑
编辑
影响因子:12.121
▸ M.smithii可与具核梭杆菌形成互利代谢关系
一项研究通过整合19项临床宏基因组数据(共1882例样本)系统分析人类肠道古菌与疾病的关系,发现古菌与多种疾病存在关联,其中结直肠癌(CRC)患者中Methanobrevibacter smithii显著富集。
进一步通过代谢建模与体外共培养实验揭示,M.smithii可与CRC相关细菌(如具核梭杆菌)形成互利代谢关系,增强细菌生长并改变代谢产物;代谢组学分析表明古菌参与产生具有肿瘤调控作用的代谢物,首次从机制上证明肠道古菌通过“营养级控制”调节细菌群落并影响肿瘤微环境。
6
严重急性营养不良患者中耗竭 ↓↓↓
M. smithii被认为是在因饮食中断和营养不足导致严重急性营养不良(SAM)的非洲儿童肠道中缺失的关键微生物。对SAM儿童粪便的PCR检测显示,该菌显著且不可逆耗竭,仅在4.2%的病例中检出,而对照组为40.9%。
▸ M.smithii影响能量获取可能是导致营养不良的原因
其在营养不良中的作用可能与肠道微生物群的能量获取能力相关。相反,研究也发现其在肥胖人群中更为丰富,提示其可能促进能量提取并加重过度营养相关疾病。因此,其在营养不良中的影响还需结合与其他肠道微生物的相互作用及对营养吸收的调节来理解。
7
M.smithii与肠外感染
M.smithii还可能在一定情况下引发肠道以外部位的感染。
▸ 心内膜炎
在发热患者,尤其是感染性心内膜炎患者的血液中已检测并分离出M. smithii。在5594份厌氧血培养中,有27例(0.5%)细菌阳性且M. smithii PCR阳性。
进一步分析3例相关样本发现:在一次血培养中,通过自体荧光和电子显微镜检测到与金黄色葡萄球菌共存的M. smithii;同时,从两例患者血液中分离并测序获得与S. mutans和S. epidermidis相关的菌株。
▸ 尿路感染
在383份尿标本中,有9%检测到M. smithii。此外,感染尿液样本中53%、18%和3%的M. smithii分别与大肠杆菌、肺炎克雷伯菌和肠杆菌属相关。
▸ 细菌性阴道炎
在细菌性阴道炎(BV)患者的厌氧阴道液中检测到产甲烷活性。通过富集、氯化物色谱及间接免疫荧光分析,鉴定出两个接近M. smithii PS和ALI株的分离株。进一步研究显示,在33例阴道样本中有32例经16S rRNA RT-PCR检测为M. smithii阳性,并在厌氧SAB培养基中分离出9株,同时FISH在2例样本中证实其存在。
▸ 鼻窦炎
在116份来自难治性鼻窦炎患者的手术标本中检测产甲烷菌,PCR共检出12个阳性样本,涉及9名患者(10.3%)。进一步通过FISH和扩增子测序分析发现,其中4名患者存在M. smithii。
▸ 肌肉脓肿
M.smithii从一名41岁患者的椎旁肌肉脓肿中分离获得。测序证实其古菌16S rRNA和mcrA基因,并在SAB培养基联合抗生素培养下表现出对阿莫西林-克拉维酸的体外耐药性及对甲硝唑的敏感性。
▸ 脑脓肿
有一项研究在脑脓肿样本中检测到M. smithii,在18例标本中仅1例经RT-PCR呈阳性。
▸ 牙脓肿
在牙龈下牙菌斑样本中检测并培养出M.smithii。另在37°C厌氧条件下培养4个月,从一例样本中成功分离出M. smithii。
Methanobrevibacter smithii作为人体肠道中最主要的产甲烷古菌之一,在肠道微生态系统中扮演着不可替代的关键角色。它以严格厌氧和氢营养型代谢为主要特征,通过利用氢气并产生甲烷,维持微生物代谢的平衡,从而促进膳食底物的进一步分解与短链脂肪酸的生成,最终影响宿主的能量获取效率。因此,M. smithii 并非传统意义上的“产能微生物”,而更应被视为调控肠道代谢网络运行的重要“生态调节者”。
在健康与疾病状态中,M. smithii的作用主要体现在其对微生物功能与代谢通路的调控,而非单纯的丰度变化。例如,在帕金森病中,其丰度并无显著改变,但却深度参与以谷氨酸为核心的代谢网络重编程;在多发性硬化中,其丰度对治疗具有响应性,可能反映肠道微生态的恢复状态。
此外,通过与其他微生物的共营养作用,M. smithii 还可间接影响致病菌的生长及多种疾病过程,并在肥胖、炎症性肠病及其他慢性疾病中表现出一定的相关性。这些证据共同表明,其对人体健康的影响具有“间接性、系统性和功能导向性”的特点。
M. smithii有望成为连接肠道微生态与宿主代谢、免疫及神经功能的重要桥梁。在未来研究中,其功能状态(如代谢活性和通路参与)可能适合作为疾病生物标志物。同时,围绕其氢代谢和共营养机制的调控,有望发展出新的微生态干预策略,用于代谢性疾病、神经系统疾病以及个体化营养管理。此外,其在肠-脑轴中的潜在作用也为探索微生物参与神经退行性疾病提供了新的方向。
主要参考文献
Malat I, Drancourt M, Grine G. Methanobrevibacter smithii cell variants in human physiology and pathology: A review. Heliyon. 2024 Sep 6;10(18):e36742.
Villa R, Martin-Gallausiaux C, Gribaldo S …
Methanobrevibacter smithii Trends in Microbiology, 2025; 34, 217-218
Malat I, Bossi V, Drancourt M, Grine G, Ruimy R. Methanobrevibacter smithii strain U29 whole genome sequence delineates M. smithii intermediate cell variants. BMC Res Notes. 2025 Oct 1;18(1):414.
Kholwadwala AS, Quigley EMM. Small Intestinal Bacterial Overgrowth and Intestinal Methanogen Overgrowth: Are They Overdiagnosed? Acta Gastroenterol Latinoam. 2025 Dec 23;55(4):276-291.
Fumagalli A, Castells-Nobau A, Trivedi D, Garre-Olmo J, Puig J, Ramos R, Ramió-Torrentà L, Pérez-Brocal V, Moya A, Swann J, Martin-Garcia E, Maldonado R, Fernández-Real JM, Mayneris-Perxachs J. Archaea methanogens are associated with cognitive performance through the shaping of gut microbiota, butyrate and histidine metabolism. Gut Microbes. 2025 Dec;17(1):2455506.
Hu X, Yu C, He Y, Zhu S, Wang S, Xu Z, You S, Jiao Y, Liu SL, Bao H. Integrative metagenomic analysis reveals distinct gut microbial signatures related to obesity. BMC Microbiol. 2024 Apr 5;24(1):119.
Zhou Y, Tao E. The role of intestinal gases in pediatric functional constipation: a narrative review of pathophysiology and emerging therapeutics. Front Nutr. 2026 Jan 2;12:1694831.
Ghoshal U, Shukla R, Srivastava D, Ghoshal UC. Irritable Bowel Syndrome, Particularly the Constipation-Predominant Form, Involves an Increase in Methanobrevibacter smithii, Which Is Associated with Higher Methane Production. Gut Liver. 2016 Nov 15;10(6):932-938.
Catlett JL, Carr S, Cashman M, Smith MD, Walter M, Sakkaff Z, Kelley C, Pierobon M, Cohen MB, Buan NR. Metabolic Synergy between Human Symbionts Bacteroides and Methanobrevibacter. Microbiol Spectr. 2022 Jun 29;10(3):e0106722.
Dirks B, Davis TL, Carnero EA, Corbin KD, Smith SR, Rittmann BE, Krajmalnik-Brown R. Methanogenesis associated with altered microbial production of short-chain fatty acids and human-host metabolizable energy. ISME J. 2025 Jan 2;19(1):wraf103.
Conway de Macario E, Macario AJ. Methanogenic archaea in health and disease: a novel paradigm of microbial pathogenesis. Int J Med Microbiol. 2009 Feb;299(2):99-108.
Mohammadzadeh R, Mahnert A, Shinde T, Kumpitsch C, Weinberger V, Schmidt H, Moissl-Eichinger C. Age-related dynamics of predominant methanogenic archaea in the human gut microbiome. BMC Microbiol. 2025 Apr 4;25(1):193.
Mohammadzadeh R, Mahnert A, Zurabishvili T, Wink L, Kumpitsch C, Habisch H, Sprengel J, Filek K, Mertelj P, Pernitsch D, Hingerl K, Durdevic M, Gorkiewicz G, Diener C, Loy A, Kolb D, Trautwein C, Madl T, Moissl-Eichinger C. Cross-domain metabolic interactions link Methanobrevibacter smithii to colorectal cancer microbial ecosystems. Nat Commun. 2026 Feb 20;17(1):2979.
Baquero DP, Borrel G, Gazi A, Martin-Gallausiaux C, Cvirkaite-Krupovic V, Commere PH, Pende N, Tachon S, Sartori-Rupp A, Douché T, Matondo M, Gribaldo S, Krupovic M. Biogenesis of DNA-carrying extracellular vesicles by the dominant human gut methanogenic archaeon. Nat Commun. 2025 Jun 3;16(1):5093.
Samuel BS, Hansen EE, Manchester JK, Coutinho PM, Henrissat B, Fulton R, Latreille P, Kim K, Wilson RK, Gordon JI. Genomic and metabolic adaptations of Methanobrevibacter smithii to the human gut. Proc Natl Acad Sci U S A. 2007 Jun 19;104(25):10643-8.
谷禾健康
环境污染
环境污染已成为普遍的全球健康威胁,但其影响远远超出了直接的器官毒性。越来越多的证据表明,肠道微生物群是污染物诱发生理功能障碍的核心介导者。本文主要探讨和关注包括空气污染物、重金属、持久性有机污染物和新兴污染物如何扰动微生物组成、代谢活性及宿主-微生物信号传递的最新进展。
污染物暴露会改变微生物来源的代谢产物,如短链脂肪酸、胆汁酸和色氨酸衍生物,从而损害肠道屏障的完整性和免疫稳态。这些微生物群驱动的干扰会引发氧化应激、慢性炎症和神经内分泌失调,导致代谢紊乱、免疫失衡、神经毒性和致癌。
从众多的文献得出的机制上看,氧化还原失衡、TLR4/NF-κB和NLRP3通路的激活以及 AhR信号失调是连接环境暴露于疾病的关键交叉点。
本文整合170多篇发表的研究成果,包括流行病学调查、动物实验、体外研究和多组学研究。通过系统总结各种污染物如何影响微生物组成和代谢功能,以及微生物菌群失调如何影响宿主的新陈代谢、免疫和神经生理,构建一个机制框架,描述“环境暴露→微生物群破坏→宿主功能障碍→疾病发展”的级联反应。
编辑
还讨论了这一新兴领域面临的关键挑战,包括对复杂污染物混合物进行更精确评估、因果关系的识别,以及微生物与宿主之间分子相互作用的阐明。
希望以深化对环境污染和肠道健康影响的理解,指导针对微生物群的疾病预防和环境风险缓解策略的发展。
▸ 肠道菌群
人类肠道中蕴藏着庞大且多样的微生物群落,随着个体的成长,饮食和环境等会因内部或外部干扰而波动。肠道微生物群承担四项对人体健康至关重要的基本功能:代谢调节、免疫调节、屏障保护和神经行为交流。
编辑
doi.org/10.3389/fmicb.2026.1737229
▸ 污染物
在现代社会中,环境污染已成为对人类健康的隐蔽而普遍的威胁。环境中存在各种污染物,主要包括空气污染物、重金属、持久性有机污染物(POPs)和新兴污染物。
编辑
doi.org/10.3389/fmicb.2026.1737229
▸ 主要环境污染物及其进入人体的途径
环境污染物种类繁多,来源复杂,可通过不同途径进入人体,并影响多个器官系统。
常见的环境污染包括空气污染、水污染、土壤污染,以及放射性污染、光污染和噪音污染等。其中,空气污染物、重金属、持久性有机污染物和新兴污染物与人体健康关系尤为密切。
★ 环境污染物既直接损伤器官,也能通过干扰肠道菌群影响健康
近年来,越来越多研究发现,这些污染物不仅会直接损伤肺、肝、肾、神经系统和胃肠道等器官,还可能通过改变肠道微生物群影响人体健康。
肠道微生物群参与营养代谢、免疫调节和肠道屏障维持,因此一旦菌群平衡被破坏,可能进一步引发炎症、代谢紊乱和多种系统性疾病。
㈠空气污染物
空气污染物包括多种气体和颗粒物,例如:
其中,PM2.5、臭氧和二氧化氮是最受关注的空气污染物。它们在全球分布并不均匀,通常在工业化程度高、人口密集、交通繁忙的地区浓度较高。其主要来源包括工业排放、汽车尾气和生物质燃烧。
空气污染物可以在大气中悬浮较长时间,并随气流进行远距离运输。人体接触空气污染物最主要的途径是吸入。污染物进入呼吸道和肺部后,可引起局部炎症和氧化应激;部分污染物或其诱导的炎症信号还可能通过血液循环影响全身器官,包括肝脏、胃肠道和肠道微生物群。
因此,空气污染的影响并不局限于肺部。它还可能通过肺—肠轴改变肠道微生态,破坏肠道屏障,并进一步影响免疫和代谢功能。
㈡重金属
重金属也是重要的环境污染物,常见类型包括铅(Pb)、汞(Hg)、镉(Cd)和砷(As)。
这些重金属广泛存在于土壤、水体和沉积物中,主要来源包括采矿、冶炼、工业生产、污水排放,以及农业中含金属化肥和农药的使用。由于重金属不能被自然降解,它们会长期残留在环境中,并通过食物链逐渐富集。
人类接触重金属的主要途径包括:
重金属进入人体后,可能损伤肝脏、肾脏、神经系统和免疫系统。同时,它们也可能改变肠道菌群组成,影响肠道屏障功能,并通过微生物代谢改变加重毒性效应。
㈢持久性有机污染物(POPs)
持久性有机污染物,简称 POPs,是一类难以降解、容易在脂肪组织中积累的有毒化学物质。常见POPs包括多氯联苯(PCBs)、二噁英和有机氯农药等。
这些化合物曾被广泛用于工业和农业生产。虽然许多 POPs 目前已经被禁止或限制使用,但由于它们化学性质稳定、脂溶性强,仍然可以长期存在于全球生态系统中。
POPs还具有远距离迁移能力。它们可以随着大气环流、水流和食物链传播到远离污染源的地区,因此具有全球性污染特征。
人体接触 POPs 的主要途径是饮食摄入,尤其是摄入脂肪含量较高的食物,如肉类、乳制品和部分水产品。此外,人体也可能通过吸入污染空气或皮肤接触而暴露于 POPs。
POPs 进入人体后,可影响内分泌、免疫、代谢和神经系统。近年来研究还发现,POPs 可能通过改变肠道微生物群,进一步影响胆汁酸代谢、炎症反应和能量代谢。
㈣新兴污染物
近年来,新兴污染物逐渐受到关注,典型代表包括微塑料和药品及个人护理用品污染物(PPCPs)。
微塑料主要来源于塑料垃圾的分解、工业生产过程以及日常塑料制品的磨损。它们已经广泛存在于海洋、河流、湖泊、土壤甚至饮用水中。
PPCPs 包括药物、化妆品、防晒剂、清洁用品和个人护理产品中的化学成分。这些物质主要通过生活污水、医院废水和工业排放进入环境。
人类可能通过以下途径接触这些新兴污染物:
与传统污染物相比,新兴污染物的使用历史相对较短,环境行为和健康效应仍在研究中。目前对其长期影响,特别是对肠道微生物群的影响,证据仍然有限。因此,新兴污染物的健康风险评估仍需要更多长期研究支持。
主要环境污染物类别、代表性来源及暴露途径
编辑
doi.org/10.3389/fmicb.2026.1737229
★ 环境污染物暴露的共同特点
不同污染物的来源和进入人体的途径有所不同,但它们有一个共同特点:人体往往不是一次性接触单一污染物,而是长期、低剂量、同时接触多种污染物。
这种长期低剂量混合暴露更接近真实生活情境。例如,一个人可能同时通过空气吸入PM2.5,通过饮食摄入POPs或重金属,又通过饮用水接触微塑料和药物残留。多种污染物共同作用时,可能产生更复杂的健康影响。
▸ 肠道菌群在污染物健康效应中的作用
肠道微生物群被污染物扰乱后,可能通过以下方式影响健康:
因此,污染物对人体的影响并不一定只是“污染物直接损伤器官”这么简单。很多情况下,污染物可能先改变肠道微生态,再通过微生物代谢产物、免疫信号和炎症反应影响全身健康。
★ 肠道微生物群作为环境毒理学的新靶点
传统毒理学研究主要关注污染物对重要器官的直接损伤,例如肺、肝、肾和神经系统损害。但近年来,越来越多证据表明,肠道微生物群也是环境污染物作用的重要靶点。
这些发现重塑了环境毒理学的概念框架,表明肠道微生物群不仅是被动旁观者,更是污染物诱发生理变化的主动介导者。这一范式转变提出了一个关键的科学问题:环境污染物是否通过扰动肠道微生物群,诱发宿主生理功能障碍和疾病?
编辑
doi.org/10.3389/fmicb.2026.1737229
为了明确污染物选择标准,我们重点关注了四大类:空气污染物、重金属、持久性有机污染物(POPs)和新兴污染物。这些基于其全球流行率、对肠道微生物群的充分记录影响,以及世界卫生组织(WHO)、美国环保署(USEPA)和国家环境机构等监管机构日益关注。
每个类别都包含具有大量肠道微生物群调节证据的代表性化合物,可以提供一个全面且聚焦的污染物-微生物群-宿主相互作用跨化学类别的概述。
代表性污染物对肠道微生物群的影响及相关健康结果
编辑
doi.org/10.3389/fmicb.2026.1737229
▸ 空气污染物及其对肠道微生物群的影响
空气污染是全球重要的公共卫生问题。它的成分非常复杂,既包括空气中的颗粒物,也包括多种气体污染物。其中,最受关注的包括细颗粒物(PM2.5)、臭氧(O₃)和氮氧化物(NOx)。
过去,人们更多关注空气污染对呼吸系统和心血管系统的危害。近年来,越来越多研究发现,空气污染还可能通过 “肺—肠轴” 影响肠道微生物群。也就是说,污染物被吸入肺部后,不仅会引起局部炎症,还可能通过血液循环、免疫反应和代谢改变影响肠道环境,最终导致肠道菌群失调,并增加多种系统性疾病的风险。
①细颗粒物(PM2.5)
PM2.5是指空气动力学直径小于或等于2.5微米的细小颗粒物。由于颗粒很小,它们可以被吸入肺部深处,甚至到达肺泡。PM2.5 还具有较大的表面积,容易吸附重金属、多环芳烃等有毒物质,因此可能携带多种有害成分进入人体。
吸入后,PM2.5 可能通过血液或淋巴系统进入身体其他部位,包括肠道,并改变肠道微生物的组成。流行病学研究和动物实验均显示,PM2.5 暴露与肠道菌群变化有关,而且这种影响可能与暴露浓度和暴露时间有关。
在人群研究中,长期暴露于高 PM2.5 环境的人群,尤其是居住在交通繁忙或工业区附近者,其肠道微生物α多样性显著下降。
注:α多样性反映菌群的丰富度和均衡性,其降低意味着物种减少、生态稳定性减弱。
PM2.5的影响亦可发生于生命早期。一项纳入168852名母亲的队列研究显示,孕期较高 PM2.5 暴露与早产风险增加相关,提示空气污染不仅危害孕妇健康,也可能影响胎儿发育及妊娠结局。
动物实验进一步支持上述发现。例如,小鼠长期暴露于约 70.9 ± 26.8 μg/m³ 的浓缩颗粒物后,出现肠道屏障受损及菌群结构改变,可能与 TLR2/5–MyD88–NLRP3 信号通路激活有关,该通路与免疫炎症反应密切相关。
另一研究中,小鼠暴露于 198.5 μg/m³ PM2.5 后,先出现短暂体重下降,随后发生代偿性增加,同时伴随肠道微环境及代谢通路显著变化,表明 PM2.5 可同时影响菌群与能量代谢。
此外,通过气溶胶浓缩系统对雄性 C57BL/6J 小鼠进行 PM2.5 暴露,并结合抗生素清除菌群及粪菌移植实验发现,PM2.5 引起的葡萄糖代谢异常与肠道菌群失衡密切相关。
进一步分析表明,短链脂肪酸(SCFAs),尤其是乙酸盐,是关键代谢环节。补充乙酸盐可部分缓解代谢异常,提示肠道菌群可能是 PM2.5 影响葡萄糖代谢的重要中介。
②臭氧(O₃)和氮氧化物(NOx)
臭氧(O₃)由三个氧原子组成,具有强氧化性。平流层臭氧可阻挡紫外线,而近地面臭氧则是重要空气污染物,近年来已成为中国及其他快速发展地区的突出环境问题。
臭氧对肠道微生物群的影响主要通过氧化应激和全身炎症间接实现。氧化应激指体内氧化物质过多,超出清除能力,从而引发细胞损伤和炎症。
研究显示,将健康大鼠及心血管疾病易感大鼠暴露于不同浓度臭氧4小时后,其肺和肾出现不同程度炎症反应。尽管未直接观察到肠道损伤,但全身炎症已被激活,提示臭氧可能通过免疫与氧化应激通路间接改变肠道微环境和菌群。
氮氧化物(NOx),主要包括一氧化氮(NO)和二氧化氮(NO₂),是交通污染的重要来源。研究发现,交通相关空气污染与肠道菌群变化及空腹血糖升高有关。
具体而言,污染暴露与拟杆菌科(Bacteroidaceae)丰度下降、瘤胃球菌科(Ruminococcaceae)丰度升高相关;前者减少、后者增加均与空腹血糖升高相关。
路径分析显示,这两类菌群变化可解释交通污染与空腹血糖升高约 24%–29% 的关联,表明空气污染可能部分通过改变肠道菌群影响宿主的葡萄糖代谢。
总体来看,空气污染不仅会损害肺部和心血管系统,也可能通过肺—肠轴影响肠道微生物群。PM2.5、臭氧和氮氧化物等污染物可以通过炎症反应、氧化应激、肠道屏障损伤和代谢通路改变,导致肠道菌群失衡。
这些菌群变化又可能进一步影响葡萄糖代谢、免疫状态和全身健康。因此,肠道微生物群可能是连接空气污染暴露与代谢性疾病、炎症性疾病等健康风险之间的重要桥梁。
▸ 重金属对肠道微生物群的影响
重金属是一类常见的环境污染物。它们有两个重要特点:不容易被降解,并且可能在生物体内不断积累。常见的重金属包括砷、镉、铅、汞等。人类接触重金属的主要途径包括食用受污染的食物、饮用受污染的水,以及职业或生活环境中的长期接触。
长期暴露可带来多种健康风险,如增加癌症发生、造成DNA损伤、干扰免疫功能,甚至引发不可逆的组织损害。
近年来研究表明,重金属除直接损伤器官外,还可通过影响肠道微生物群和肠道屏障危害健康。其在肠道内会对菌群产生选择压力,促使耐受菌增殖,并通过诱导氧化应激、改变基因表达,破坏肠道微生态平衡。
不同重金属的毒性机制各异,对肠道菌群及人体健康的影响也存在差别。
①砷:可改变肠道菌群,并影响全身代谢
砷可以以不同形式存在,主要包括无机砷和有机砷。其中,无机砷,如三价砷和五价砷,毒性通常更强。对人类来说,受污染的饮用水是砷暴露的重要来源。在一些地区,例如孟加拉国以及中国西部部分地区,地下水中的砷含量可能超过安全限值。
流行病学研究表明,高砷暴露与肠道菌群结构改变相关。例如,生活在砷污染地区的儿童肠道中变形菌门丰度升高,同时富集与毒力和抗生素耐药相关的功能基因。
注:变形菌门包含多种机会致病菌或病原菌,如大肠杆菌、幽门螺杆菌、克雷伯氏菌、沙门氏菌、志贺氏菌、铜绿假单胞菌、霍乱弧菌和空肠弯曲菌等,其增多通常提示肠道微生态失衡。
此外,从这些儿童体内分离的大肠杆菌携带砷抗性基因且表达增强,表明长期砷暴露可促使肠道细菌获得或强化抗砷能力。
动物实验亦支持这一结论:小鼠经饮水长期暴露于不同浓度砷后,出现肝损伤及菌群失调;暴露数周的无机砷亦可显著改变肠道微生物结构。
代谢组学分析进一步发现,砷暴露会引起血液、肝脏和粪便中多种代谢物异常,其中多与肠道微生物相关,提示砷不仅改变菌群组成,还影响其代谢功能,并扰乱全身代谢平衡。
②镉:可能通过“肠—脑轴”影响认知功能
镉和铅是环境中较常见的重金属污染物。它们的肠道毒性机制有一定相似性:都可能诱发氧化应激,破坏肠道微生态平衡,并促进某些耐受重金属的细菌增殖。
镉主要通过饮食进入人体,尤其来源于受污染土壤中种植的农作物,如稻米等主食。
动物研究表明,长期摄入含镉饮水可导致肠道菌群失调并影响神经功能。例如,小鼠连续 9 周暴露于一定浓度镉后出现认知损伤;同时伴随肠道屏障受损、炎症因子变化、海马相关基因表达异常,以及肠源性神经活性代谢物紊乱。
这些结果提示,镉的神经毒性不仅源于对大脑的直接作用,也可能通过肠—脑轴间接实现,其中肠道菌群和屏障功能是关键中介。
此外,研究还发现镉暴露可抑制呼吸代谢和免疫反应,诱导氧化应激,并改变能量代谢相关基因表达,可能反映机体对长期镉胁迫的适应性反应。
③铅:可能促进耐重金属细菌增加
铅的暴露途径与镉相似,主要来自受污染的食物、水及环境或职业接触。
一项纳入696名参与者的研究发现,尿铅水平与肠道菌群多样性变化相关:尿铅较高者肠道中变形菌门及伯克氏菌目等细菌丰度增加。
这表明铅可能通过改变肠道微生态,促进耐重金属的机会性细菌生长,进而削弱菌群稳定性,并增加炎症或感染风险。
④汞:可能损伤肠道屏障,并通过食物链累积
汞可在环境中转化为毒性更强的甲基汞,并在食物链中逐级富集。人类主要通过食用鱼类,尤其是处于食物链高位的大型掠食性鱼类而暴露。
鱼类实验表明,膳食甲基汞未必导致急性死亡,但在体内累积至一定水平后,会显著影响其生长、繁殖和行为;野外研究亦提示,低剂量暴露也可能影响种群稳定。
在人类和哺乳动物中,无机汞和甲基汞均具有神经毒性和免疫毒性。相较之下,其对肠道上皮和菌群的直接影响研究较少。
细胞实验显示,肠上皮细胞暴露于无机汞或甲基汞后,氧化还原平衡被破坏,通透性增加,紧密连接受损,即肠道屏障变“更漏”。
因此,肠道屏障损伤可能是汞引发全身毒性的重要途径之一。
★ 肠道微生物也会“改造”重金属
重金属进入肠道后并非保持不变,肠道微生物可通过酶系统和氧化还原反应参与其转化。
例如,部分微生物可对砷和汞进行甲基化或去甲基化,改变其化学形态、毒性及吸收程度。硫酸盐还原菌可将无机汞转化为更易吸收且神经毒性更强的甲基汞;而其他微生物过程则可能将其转化为更难吸收或更易排出的形式,从而降低毒性。
此外,铬、硒等元素也可被微生物改变价态,不同价态对应不同毒性和健康风险。
这些转化受微生物基因调控,如编码金属还原酶、氧化酶和转运蛋白的基因;在长期暴露下,这些基因可能富集,使菌群逐步适应重金属压力。
因此,肠道微生物对重金属的转化具有“双刃剑”效应:既可能降低毒性,也可能生成更易吸收、危害更大的形式。
▸ 持久性有机污染物对肠道微生物群的影响
持久性有机污染物,简称 POPs,是一类很难在环境中降解的有毒化学物质。它们通常容易溶解在脂肪中,因此会在动物和人体内长期积累。POPs还可以随着空气、水流和食物链传播到很远的地方。
常见的 POPs 包括:
这些物质可以通过食物链不断富集。例如,小鱼摄入污染物后被大鱼吃掉,大鱼又被人类或其他动物食用,污染物浓度就会一级一级升高。因此,POPs 不仅会影响生态系统,也可能危害人体健康。
近年来,肠道微生物群逐渐受到关注。研究发现,肠道微生物并不只是被 POPs 影响的“受害者”,它们还可能参与污染物的代谢,并影响宿主对污染物的反应。也就是说,POPs 会改变肠道菌群,而肠道菌群的变化又可能进一步影响人体的代谢、免疫功能,甚至神经行为。
①PCBs和TCDD:通过 AhR 影响肠道和免疫
PCBs 和 TCDD 可激活芳基烃受体(AhR),这一细胞内“环境感应器”参与外源化学物代谢及免疫调控。
AhR 被激活后,宿主细胞与肠道微生物的基因表达均可能改变,打破菌群平衡,导致失调并损害肠道功能。
尽管PCBs已被管控多年,但因其高度稳定,仍广泛存在。动物研究发现,母体暴露于 PCB-126 会使成年后代肠道菌群的丰富度和多样性下降,并改变特定菌群组成,从而可能增加其晚年慢性疾病风险,这种影响并不完全依赖于饮食或运动。
机制上,PCB 通过激活 AhR 上调炎症因子(如 IL-6、TNF-α)表达,使肠道处于长期低度炎症状态,抑制有益菌生长并加剧菌群失衡。
②TCDD:影响胆汁酸代谢和肠道-肝轴
TCDD 是一类高毒性的二噁英,可持续激活 AhR,并影响肠道菌群及宿主代谢。
小鼠研究表明,TCDD 暴露会改变胆汁酸代谢,并可能诱发非酒精性脂肪肝(NAFLD)。同时,肠道菌群发生变化,如乳酸杆菌增多、次级胆汁酸水平升高。
宏基因组分析进一步发现,与胆汁酸合成相关的微生物基因也发生改变,提示 TCDD 可能通过“肠道-肝轴”影响肝脏功能,即菌群变化影响胆汁酸代谢,进而作用于肝脏。
另一项研究显示,母体在妊娠和哺乳期暴露于 TCDD,高剂量会导致母体及后代菌群失调、色氨酸代谢紊乱,并增加潜在致病菌。
但也有研究发现,低剂量 TCDD 在某些情况下反而减少后代肠道致病菌,提示其对肠道微生物的影响具有剂量依赖性,甚至可能产生相反效应,并具有跨代影响。
③DDT和PBDEs:也会扰乱肠道菌群
DDT 是曾广泛使用的有机氯农药,虽已在多国被限制或禁用,但因其高度稳定,仍可在土壤、水体和生物体内检测到。
PBDEs 是用于塑料、纺织品和电子产品的阻燃剂,亦属常见持久性有机污染物,其结构和毒理作用与 PCBs 部分相似。
研究表明,DDT 和 PBDEs 均可改变肠道微生物群,如减少有益菌、增加与炎症或代谢紊乱相关的菌群。但其影响受暴露剂量、时间、物种、饮食及个体原有菌群状态等多因素调控,因此具有明显的情境依赖性。
有研究发现,围产期暴露 PBDE-47 会干扰后代肠道菌群的发育、组成及代谢;而孕期和哺乳期补充罗伊氏乳杆菌(Lactobacillus reuteri)可在性别依赖性下缓解这些影响,恢复菌群多样性,并改善体重和神经行为表现。
总体来看,POPs 不只是直接损害器官和组织,它们还会通过改变肠道微生物群影响健康。PCBs、TCDD、DDT 和 PBDEs 等污染物都可能破坏肠道菌群平衡,并进一步影响炎症反应、胆汁酸代谢、色氨酸代谢以及肠道-肝轴功能。
换句话说,肠道微生物群可能是连接环境污染物暴露与慢性疾病风险之间的重要桥梁。
编辑
doi.org/10.3389/fmicb.2026.1737229
▸ 新兴污染物及其对肠道微生物群的影响
随着环境检测技术进步,许多以往难以发现的污染物逐渐进入公众视野,被称为新兴污染物,如微塑料、纳米塑料、抗生素耐药基因以及药品和个人护理品残留等,已受到广泛关注。
这类污染物通常具有难降解、分布广等特点,并可能干扰人体与肠道微生物的平衡,可通过食物、饮水及日常环境进入人体。
进入体内后,它们可能通过破坏肠道屏障、释放有害物质或促进耐药基因传播等途径影响肠道健康。因此,其对人体健康的潜在影响已成为环境毒理学的重要研究方向。
①微塑料与纳米塑料
微塑料指直径约1微米至5毫米的塑料颗粒,纳米塑料则小于1微米,来源包括塑料制品在环境中的风化破碎及工业生产过程。
这类颗粒已广泛存在于水体、土壤、空气和食物链中。研究表明,它们可通过物理损伤、化学毒性和载体效应三种机制影响肠道微生物:既可能直接刺激或破坏肠道,也可释放有害添加剂,或作为“载体”携带其他污染物进入体内。
其毒性与粒径、表面特性及塑料类型密切相关;通常粒径越小,与组织和微生物的相互作用越强,潜在影响也越大。
√物理影响:小颗粒可能更容易穿过肠道屏障
相比尺寸较大的塑料颗粒,纳米塑料由于体积更小,通常表现出更强的生物活性。动物实验显示,摄入纳米级塑料后,对肠道和造血系统造成的影响可能比大颗粒塑料更明显。
研究发现,小鼠口服微塑料或纳米塑料后可出现肠道菌群失衡,并伴随造血系统异常,提示肠道微生物变化可能影响全身健康。
机制上,纳米塑料可穿过肠上皮紧密连接进入黏膜层并直接接触微生物,导致细菌膜受损、通透性增加,甚至引发部分菌体死亡。
此外,小鼠长期口服约2微米的聚氯乙烯微塑料会出现肠道损伤,并伴随菌群结构和代谢物改变,提示即使低剂量、长期摄入也可能对肠道健康构成风险。
√化学效应:塑料中的添加剂可能释放出来
塑料并非单一材料,生产中常加入增塑剂、稳定剂、阻燃剂等以改善性能。这些添加剂进入人体后可从塑料颗粒中释放,产生额外毒性。
例如,常见增塑剂邻苯二甲酸酯(如 DEHP)长期暴露可导致胆固醇代谢紊乱。研究表明,DEHP 还能改变肠道微生物组成,影响胆汁酸代谢,并通过肠—肝轴干扰肝脏胆汁酸合成。
这表明,微塑料相关化学物质不仅影响肠道,还可能进一步影响全身代谢。
此外,不同塑料的效应存在差异,如聚苯乙烯较聚乙烯或 PET 更易吸附有毒物质,因而可能对肠道微生物产生更强干扰。
√载体效应:微塑料可能“搭载”其他污染物进入肠道
微塑料和纳米塑料还有一个特殊问题:它们表面积较大,容易吸附环境中的其他污染物,例如重金属、持久性有机污染物以及塑料添加剂等。因此,它们可能像“污染物载体”一样,把其他有害物质一起带入人体肠道。
研究表明,微塑料可吸附邻苯二甲酸酯并将其带入小鼠肠道,其在肠道中的累积程度与对微塑料的吸附能力相关,即吸附性越强,越易随微塑料进入并滞留。
在一项联合暴露实验中,小鼠连续 30 天接触被 DEHP 污染的微塑料后,出现肠道通透性升高、炎症增强及菌群结构改变,部分受影响菌群与能量代谢和免疫功能密切相关;同时,与氧化应激和炎症相关的基因表达也发生变化。
这些结果表明,实际环境暴露多为多种污染物共同作用,微塑料可与其他化学物协同影响,产生更复杂甚至更强的健康效应。
②抗生素耐药基因(ARGs)
抗生素耐药基因(ARGs)是赋予细菌抗药性的遗传信息,可随可移动遗传元件在细菌间传播,近年来被视为重要的新型环境污染物。
ARGs 广泛存在于土壤、水体和动物粪便中,并可通过受污染的食物或饮水进入人体肠道。进入体内后,这些基因可通过“水平基因转移”在细菌间扩散,使原本不具耐药性的菌获得抗生素抵抗能力;一旦转移至致病或机会致病菌,可能增加耐药感染风险。
在谷禾健康检测报告的抗生素耐药风险评估中,部分用户即使近期并未使用抗生素,仍检出较高的耐药风险。这可能与抗生素耐药基因在环境中的污染及其传播有关。
编辑
<来源:谷禾健康肠道菌群检测数据库>
目前研究主要聚焦两个问题:一是 ARGs 在肠道中的传播效率,二是其对肠道微生物群组成的影响。
在肠道内,细菌可通过转导(病毒介导)和接合(直接接触)等方式交换遗传信息,促进共生菌与潜在致病菌之间的基因传播。随着生物信息学技术的发展,研究人员已能更准确识别耐药基因的宿主及其在群落中的传播频率,为制定干预策略、遏制耐药基因扩散提供了依据。
③药品和个人护理产品(PPCPs)
药品和个人护理产品(PPCPs)包括抗生素、止痛药、抗抑郁药、激素、防腐剂、紫外线滤镜和化妆品等,正成为重要的环境污染物。它们主要通过废水排放和农业径流进入环境,且难以在传统处理系统中完全降解,从而对水生生物和人类造成长期、低剂量暴露风险。
越来越多证据表明,PPCPs 即使在环境相关浓度下也可扰乱肠道微生物群的组成、多样性和功能。例如,常见抗菌剂三氯生可降低Lachnospiraceae 和 Ruminococcaceae 的丰度,同时增加促炎的变形菌门;在小鼠中,长期暴露还会改变微生物代谢通路,损伤上皮屏障并加重结肠炎。
非抗生素类 PPCP,如卡马西平和氟西汀,也能调控与神经递质代谢和应激反应相关的微生物基因表达。斑马鱼研究显示,氟西汀暴露可增加放线菌丰度并改变氨基酸生物合成通路,可能影响神经行为。此外,多种 PPCP(如 NSAIDs 和紫外线滤镜)联合暴露的人群研究发现,胆汁酸代谢改变和短链脂肪酸(SCFA)下降,提示其与炎症和代谢综合征相关。
尽管已有进展,关于长期效应、混合暴露及个体差异仍存在明显不足。目前多数功能研究集中于啮齿动物或水生模型,缺乏人群高分辨率纵向数据。未来需结合宏基因组、代谢组和转录组等多组学与环境暴露评估,以阐明其与肠道菌群失调的因果关系。
总体而言,污染物对肠道微生物群的影响具有复杂性和动态性:短期暴露多为可逆改变,而长期暴露(尤其在动物中)可导致持续性改变。但在人类中的长期证据仍有限,有待进一步纵向与干预研究验证。
污染物引发的肠道微生物群改变通常源于直接与间接机制的共同作用。直接作用包括氧化应激、膜损伤、基因毒性及群体感应干扰,常见于重金属、抗生素和纳米颗粒。
间接作用则通过诱导宿主的代谢、内分泌和免疫反应改变微生物组成。例如,全氟化合物可通过影响胆汁酸代谢和免疫状态重塑肠道菌群。这些过程涉及氧化应激反应、芳香烃受体(AhR)信号激活、肠上皮屏障受损及黏膜炎症增强等通路,不仅驱动菌群变化,也可能进一步影响全身健康。
▸ 氧化应激在微生物群破坏中的核心中介作用
氧化应激是连接环境污染暴露、肠道菌群失衡与宿主肠道损伤的关键机制。重金属、微/纳米塑料、持久性有机污染物、农药及电离辐射等进入机体后,主要通过两条途径升高活性氧(ROS):一是受损线粒体电子传递链产生的线粒体 ROS,二是细胞膜 NADPH 氧化酶系统(NOX/DUOX)生成的 ROS。
√ 污染物干扰线粒体导致氧化失衡
当污染物干扰线粒体氧化磷酸化时,会增加复合物 I 和 III 的电子泄漏,降低膜电位并产生过量 ROS,进而引发脂质过氧化、DNA 损伤和细胞凋亡。与此同时,NOX1、NOX2 和 DUOX2 虽参与应激和免疫防御,但长期过度激活会削弱肠道屏障并促进慢性炎症。
因此,线粒体与 NOX/DUOX 来源的 ROS 共同导致肠道氧化还原失衡,不仅损伤宿主细胞,也进一步改变肠道微生态结构与功能。
编辑
doi.org/10.3389/fmicb.2026.1737229
上面示意图展示了污染物促进肠道氧化应激的两条主要途径:
(1)污染物损伤线粒体呼吸链,导致线粒体 ROS 过量产生;
(2)污染物激活肠上皮细胞表面的 NOX/DUOX 酶系统,进一步促进 ROS 生成。
这两类 ROS 来源可相互作用并产生放大效应,加剧肠道氧化还原失衡。持续升高的 ROS 会损伤紧密连接、削弱黏液层并扰乱微生态,促进炎症发生。
√ 过量活性氧会削弱肠上皮的防御功能
过量活性氧(ROS)还会降低肠上皮防御功能,增加通透性,使脂多糖(LPS)等微生物产物更易穿过屏障进入体内,形成“肠漏”,进而促进促炎菌增殖、抑制有益菌,导致菌群失调。
在分子层面,ROS 可激活 MLCK/肌球蛋白及 NF-κB/MAPK 通路,下调闭塞蛋白、ZO-1 等关键屏障蛋白并增强炎症因子释放,形成“氧化应激—屏障损伤—菌群失调—炎症”的恶性循环。
同时,肠道微生物也能调控 ROS 水平。共生菌产生的乳酸及相关信号可激活上皮细胞 NOX,促进 ROS 生成并调节干细胞更新:生理水平有助于维持稳态,过量则可能引发异常增生和菌群紊乱,体现宿主—微生物相互作用对肠道生态的影响。
√ ROS还扰动代谢平衡
短链脂肪酸(SCFA),尤其丁酸,可通过G蛋白偶联受体和 Nrf2/ARE 通路减轻氧化应激、增强屏障功能;而菌群失调导致 SCFA 减少时,抗氧化与屏障保护能力随之下降,使肠道更易受损。
因此,在颗粒物、辐射、农药等环境暴露下,ROS 介导的屏障破坏与菌群失调可能成为系统性炎症和代谢紊乱的起点,并通过肠—肝轴、肠—脑轴影响全身健康,为污染暴露与疾病之间的关联提供了重要机制解释。
▸ AhR 作为连接环境感测与肠道免疫的集成枢纽
芳香烃受体(AhR)信号通路是环境污染物毒理作用的关键枢纽,连接外源物代谢与免疫调控。AhR 在胞质中通常与热休克蛋白 90(HSP90)和 X 相关蛋白 2(XAP2)等伴侣蛋白形成复合体;当内源或外源配体结合后,复合体构象改变、伴侣蛋白解离,促使配体-AhR 复合体转位入核。
AhR连接污染物、肠道菌群与免疫机制
编辑
doi.org/10.3389/fmicb.2026.1737229
许多环境污染物,如 TCDD、二噁英、多氯联苯(PCBs)和多环芳烃(PAHs),都可以作为 AhR 的外源性配体,激活肠上皮细胞和免疫细胞中的 AhR 信号通路。
AhR 被配体激活后由胞质转位入核,与核转运子 ARNT 形成异二聚体,并结合芳香烃响应元件(AHRE),调控靶基因表达,从而影响外源物代谢、免疫反应、肠道屏障及微生物群组成。
√ AhR 过度激活与肠道炎症失衡
AhR 信号具有明显的“双向调节”作用。不同来源的配体会产生不同的生物学效应。外源性有毒污染物,如 TCDD、二噁英、PCBs 和 PAHs,通常会导致 AhR 持续、过度激活。
这种异常激活可上调多种代谢酶,例如 CYP1A1、CYP1B1 和 ALDH3A1,同时促进炎症因子 IL-6、TNF-α 和 IL-1β 的释放。长期来看,这会增强氧化应激,破坏肠道黏膜平衡,并推动慢性肠道炎症和菌群失调的发生。
√ 内源性AhR配体的保护作用及其免疫调控机制
相比之下,内源性或肠道微生物来源的 AhR 配体通常发挥保护作用。例如,肠道菌群代谢色氨酸后产生的吲哚类代谢物,如吲哚-3-醛(I3Ald)和吲哚-3-乙酸(IAA),可以温和、短暂地激活 AhR。这种生理性 AhR 激活有助于促进 IL-22 分泌,增强上皮修复能力,维持黏液层和杯状细胞功能,并支持肠道免疫耐受和黏膜稳态。
此外,AhR信号还与氧化应激和炎症通路密切交互。AhR 的激活可以影响 NF-κB 信号通路和 NLRP3 炎症小体活性,从而参与调节炎症因子的产生。同时,它也会影响短链脂肪酸(SCFA)水平、杯状细胞功能以及肠道微生物群组成。因此,AhR 可以被看作是整合“污染物暴露—微生物代谢—免疫炎症—氧化应激”信号的关键节点。
总体来看,适度的 AhR 激活有助于维持肠道屏障完整性、促进组织修复并保持免疫平衡;而污染物诱导的持续 AhR 过度激活,则会打破这种平衡,使肠道微环境从稳态转向氧化应激、慢性炎症和菌群失调。
▸ 肠道屏障完整性的破坏
肠道屏障是连接宿主与外界的首道防线,由黏液层、上皮紧密连接和免疫成分协同维持稳态。环境污染物通过诱导氧化应激、炎症因子过度产生及直接损伤上皮蛋白,破坏屏障结构,增加通透性并引发菌群失调。
编辑
doi.org/10.3389/fmicb.2026.1737229
环境污染物可通过多种方式损伤肠道屏障。主要机制包括:
(1)减少杯状细胞分泌黏蛋白 MUC2,使黏液层变薄;
(2)通过 ROS 相关氧化应激信号,下调或破坏紧密连接蛋白,如 occludin、claudin 和 ZO-1;
(3)激活 MLCK 和 PKC 等信号通路,引起细胞骨架收缩。
这些变化会使肠上皮细胞之间的连接变得松散,增加肠道通透性,从而使肠腔内的细菌、脂多糖(LPS)和其他毒性产物更容易穿过肠屏障,进入黏膜甚至全身循环,最终促进慢性炎症和肠道菌群失调。
√ 环境污染物诱导的肠道屏障损伤与炎症级联
肠道黏液层是保护上皮的第一道防线,兼具物理与生化屏障功能,可阻止病原体和毒素接触上皮细胞。污染物如双酚 A(BPA)可通过诱导线粒体功能障碍和氧化应激,抑制杯状细胞分泌黏蛋白 2(MUC2),使黏液层变薄,降低对细菌和毒素的防御能力。
MUC2 表达受 p53 等转录因子调控,其下降会显著削弱黏膜保护。研究表明,黏液屏障受损是溃疡性结肠炎等炎症性肠病的早期特征之一,可促进微生物易位和炎症发生。
同时,污染物还会破坏上皮细胞间的紧密连接。PM2.5 及镉、铅等重金属可通过氧化应激下调 occludin、claudin 和 ZO-1 等蛋白,增加肠道通透性;MLCK 和 PKC 的激活则引发细胞骨架收缩,扩大细胞间隙,加重“肠漏”。
持续的屏障损伤使 LPS 等微生物产物进入血液,与免疫细胞表面的 TLR4 结合,激活 NF-κB 炎症通路,进而引发内毒素血症、代谢紊乱和免疫失衡,形成恶性循环。
因此,肠道屏障既是污染物损伤的直接靶点,也是连接污染暴露、氧化应激、菌群失调与全身炎症的关键环节,其破坏会打破宿主与微生物平衡,并推动局部炎症向全身性病变发展。
▸ 免疫炎症反应的扩增与持续性
在氧化应激和屏障破坏后,环境污染物会引发一连串免疫激活,可能从急性黏膜炎症进展为慢性系统性失调。持续暴露维持细胞因子的产生,招募免疫细胞,改变肠道微生物群,形成自我强化的炎症和氧化损伤循环。
正反馈循环推动污染物诱导的慢性炎症
编辑
doi.org/10.3389/fmicb.2026.1737229
√ 污染物驱动的免疫失衡与炎症放大机制
炎症早期,模式识别受体尤其是 TLR4 识别 LPS 或污染物信号,激活 MyD88–NF-κB 和 MAPK 通路,促进 IL-6、TNF-α、IL-1β 等产生;短期有利于防御,但持续激活会转为慢性炎症。重金属和多环芳烃(PAHs)还可激活 NLRP3 炎症小体,促进 IL-1β、IL-18 过度释放,放大炎症。
ROS 还促进巨噬细胞向促炎 M1 型极化并抑制 M2 型,导致炎症加重;同时,污染物促进 Th17 分化和 IL-17A 释放,抑制 Treg 及 IL-10,削弱抗炎调节。
此外,污染物引起菌群失调,减少产短链脂肪酸(SCFAs)的有益菌,降低丁酸盐水平,削弱其对 HDAC 和 NF-κB 炎症通路的抑制作用,使炎症更难终止。
√ AhR配体缺失与炎症正反馈循环
同时,能代谢色氨酸的共生菌减少,导致 AhR 配体(如吲哚-3-醛)生成下降,削弱 IL-22 介导的黏膜修复,使受损屏障更难恢复并加剧炎症。
因此,污染物、ROS、LPS、炎症因子与菌群失调形成正反馈循环:污染物诱导 ROS,ROS 破坏屏障;屏障受损促进 LPS 移位并激活免疫;免疫反应持续释放炎症因子;炎症与污染物进一步扰乱菌群,减少 SCFAs 等保护性代谢物;这些变化又加重屏障损伤和氧化应激,最终推动炎症长期化。
在全身层面,进入血液循环的 LPS 和炎症细胞因子还可以通过肠-肝轴和肠-脑轴影响远端器官。例如,它们可激活肝脏中的库普弗细胞和中枢神经系统中的小胶质细胞,进而参与非酒精性脂肪肝、神经炎症和代谢综合征等肠外疾病的发生。这说明肠道免疫激活不仅是局部炎症反应,也是污染物导致全身毒性效应的重要机制。
编辑
doi.org/10.3389/fmicb.2026.1737229
小结
总体来看,污染物诱导的免疫反应并不是单一、短暂的过程,而是会通过 ROS 过量产生、炎症信号激活、肠道屏障损伤和菌群失调等多个环节相互放大,使急性上皮炎症逐渐发展为慢性、系统性的炎症状态。
理解这一正反馈机制,有助于开发抗炎治疗以及靶向肠道菌群的干预策略,从而减轻污染物相关慢性疾病的发生和发展。
过去十年中,越来越多研究表明,环境污染物不仅直接损伤特定器官,还可以通过扰乱肠道菌群,引发全身性毒性反应。这种影响可进一步改变宿主代谢、免疫稳态和疾病易感性。然而,目前该领域仍存在一些关键问题尚未解决。这在一定程度上与传统毒理学长期采用“器官中心”研究模式有关,即更多关注污染物对肝脏、肺、肾脏或神经系统等单一器官的直接损伤,而对肠道菌群介导的全身效应认识不足。
污染物、菌群失调与疾病之间的因果关系仍不清楚
目前多数研究主要停留在相关性分析层面,即观察污染物暴露后哪些菌群发生变化,以及这些变化是否与炎症、代谢紊乱或组织损伤相关。但这类研究往往难以回答一个关键问题:菌群失调究竟是污染物毒性的原因,还是毒性结果的一部分?
换句话说,污染物可能直接损伤宿主组织,也可能先改变肠道菌群,再通过菌群代谢物、免疫调节和屏障功能改变引发疾病。目前很多研究尚未有效区分这两类机制。
此外,宿主自身因素也会影响污染物毒性和菌群反应,包括年龄、性别、饮食结构、遗传背景和基础健康状态等。例如,高纤维饮食可能通过促进短链脂肪酸产生,缓解污染物导致的菌群功能下降;而衰老个体的肠道菌群恢复能力较弱,可能更容易受到污染物影响。免疫调节或解毒代谢相关基因的差异,也可能导致个体对污染物暴露的敏感性不同。
因此,未来研究应更多采用多污染物共暴露模型,并纳入宿主个体差异因素,以更接近真实环境暴露情境。同时,暴露组学、微生物组学和计算建模的结合,有助于解析复杂暴露条件下污染物与肠道菌群之间的网络关系。
主要参考文献:
Ma W, Xiong X, Tian Z, Li L and Huang Y (2026) Environmental pollutants and the gut microbiota: mechanistic links from exposure to systemic disease. Front. Microbiol. 17:1737229.
AgarwalM.HoffmanJ.Ngo TenlepS. Y.SantarossaS.PearsonK. J.SitarikA. R.et al. (2023). Maternal polychlorinated biphenyl 126 (PCB 126) exposure modulates offspring gut microbiota irrespective of diet and exercise. Reprod. Toxicol. 118:108384.
Aravind KumarJ.KrithigaT.SathishS.RenitaA. A.PrabuD.LokeshS.et al. (2022). Persistent organic pollutants in water resources: fate, occurrence, characterization and risk analysis. Sci. Total Environ. 831:154808.
AldereteT. L.JonesR. B.ChenZ.KimJ. S.HabreR.LurmannF.et al. (2018). Exposure to traffic-related air pollution and the composition of the gut microbiota in overweight and obese adolescents. Environ. Res.161, 472–478
AlexanderC.RietschelE. T. (2001). Bacterial lipopolysaccharides and innate immunity. J. Endotoxin Res. 7, 167–202
AndersenO. (2016). A characterisation of low-grade inflammation and metabolic complications in HIV-infected patients. Dan. Med. J. 63:B5291.
谷禾健康
现在越来越多的人出现血脂不正常、腰围增加、血糖略高,这背后的隐藏风险,可能正在悄悄累积。
在全球范围内,代谢综合征已成为最受关注的健康挑战之一,患病率仍呈逐年上升趋势。它不仅显著增加心血管疾病、2型糖尿病及脂肪肝的风险,也对医疗资源和生活质量带来巨大压力。更让人警惕的是,这种代谢异常往往早期无明显症状,很多人直到发现血脂异常或血糖升高才意识到问题。
医学界和科学界也一直都在不断探索代谢综合征的发病机制和新的干预途径。传统的观点主要关注遗传因素、生活方式以及宿主自身的代谢紊乱,但近年来多个证据同时表明,代谢综合征和血脂异常通常同时存在——肠道菌群是将它们联系起来的关键因素之一。
肠道菌群影响食物的消化方式、胆汁酸的处理以及炎症信号在全身的释放。当肠道生态系统失衡时,新陈代谢可能转向胰岛素抵抗和脂质处理改变——这会导致甘油三酯升高、高密度脂蛋白(俗称好胆固醇)降低,有时还会增加 LDL 颗粒。
相关机制包括短链脂肪酸、胆汁酸、TMAO等。例如肠道细菌将初级胆汁酸转化为调控能量平衡、葡萄糖代谢及胆固醇处理的次级胆汁酸,通过FXR和TGR5受体发挥作用。某些微生物模式减少有益胆汁酸转化,降低胆固醇清除效率,进一步加剧脂质调节异常。同时,代谢综合征与低度炎症相关,菌群失衡可增加肠道通透性,使细菌成分激活免疫通路,加重胰岛素抵抗和血脂异常,形成一个循环,可能延续血脂异常。
本文将从多个层面深入探讨肠道微生物群如何影响血脂代谢,以及这些微生物学的改变如何最终导致血脂异常的发生。首先介绍代谢综合征的流行病学现状和临床特征,然后聚焦于血脂异常在代谢综合征中的核心地位,接着详细阐述肠道微生物群影响血脂代谢的五大核心机制,总结代谢综合征患者特征性的微生物组模式改变,最后讨论为什么肠道菌群检测对于代谢综合征的防控具有重要意义,以及这一领域未来的发展方向和临床转化前景。
代谢综合征是什么?
代谢综合征(英文名为Metabolic Syndrome,经常被简称为MetS),它是一组代谢紊乱症候群的集合。
根据国际糖尿病联盟(IDF)及多学会联合发布的统一诊断标准,代谢综合征的诊断需要满足以下五项中的三项或更多:
从这个诊断标准我们可以看出,血脂异常本身就是代谢综合征的核心诊断指标之一,这也说明了血脂异常在代谢综合征中的重要地位。
代谢综合征的全球发病率持续上升
全球成人代谢综合征患病率约为20%–25%(多项流行病学研究估计),这个比例意味着每四个成年人中就有一个患病,患者总数已经超过了10亿人。
更值得警惕的是,在过去数十年中呈显著上升趋势。这种快速增长的背后,是全球范围内肥胖症的流行。肥胖,特别是腹型肥胖,正是代谢综合征最重要的危险因素之一。
主要风险因素
代谢综合征的发生发展是一个复杂的过程,是遗传因素与环境因素长期相互作用的结果。我们可以将这些风险因素分为不可控和可控两大类。
不可控的风险因素:
年 龄
年龄是一个无法改变的因素,然而,它能帮助我们识别高风险人群。随着年龄增长,患代谢综合征的风险显著增加。
具体而言,随着年龄的增长,肌肉量会逐渐减少,而肌肉是消耗葡萄糖的关键组织。肌肉量的减少直接导致胰岛素敏感性下降。与此同时,随着年龄的增长,内脏脂肪的积累也会加重代谢负担。
遗 传
遗传易感性也是一个重要的不可控因素。研究已经发现了数十个与代谢综合征相关的遗传位点,这些位点每个单独的效应虽然不大,但累积起来可以显著影响患病风险。
如果父母或兄弟姐妹中有人患有代谢综合征、2型糖尿病或心血管疾病,患病几率会显著增加。
不过,遗传易感性并不意味着必然患病,健康的生活方式仍然能够有效地预防疾病的发生。
性 别
性别我们前面已经提到了,男性患病风险高于绝经前女性,这主要是性激素的保护作用在起作用。
女性在绝经前由于雌激素对脂质代谢、脂肪分布和血管功能具有一定保护作用,风险相对较低;但绝经后,随着雌激素水平下降,内脏脂肪增加、LDL-C升高、胰岛素敏感性下降,代谢综合征发生风险会明显上升。
可控的风险因素:
饮食——关键变量
饮食不是吃得多或者少的问题,是能量摄入、营养结构、脂肪类型、碳水质量、膳食纤维水平和饮食节律共同决定了代谢后果。
——饮食结构
富含饱和脂肪、反式脂肪、添加糖和精制碳水化合物的饮食模式,会促进能量过剩、内脏脂肪堆积、肝脏脂质合成增加和胰岛素抵抗。长期如此,机体更容易出现中心性肥胖、甘油三酯升高、脂肪肝、血糖异常等代谢综合征相关表现。
膳食纤维、全谷物、豆类、蔬菜水果、多酚类食物和优质不饱和脂肪酸摄入不足,也会削弱代谢保护作用。尤其是膳食纤维不足,会减少肠道菌群可利用底物,影响短链脂肪酸生成、肠屏障功能和炎症调节。
——脂肪摄入问题
需要强调的是,脂肪本身并不是一概有害。适量膳食脂肪对细胞结构、脂溶性维生素吸收、饱腹感和能量平衡都有重要作用。需要关注的是脂肪来源和脂肪酸类型。
从肠道微生态角度看,饮食也是塑造肠道菌群结构和功能的主要外部因素。长期高脂、高糖、低纤维饮食可能降低产短链脂肪酸菌,影响胆汁酸代谢和肠道屏障功能,进一步加重代谢异常。
运 动
缺乏运动是另一个重要的可控危险因素。出门坐车,上楼电梯,办公室久坐,回家躺着看电视,每天的体力活动量比五十年前减少了很多。规律的运动不仅可以帮助我们控制体重,还能提高骨骼肌胰岛素敏感性,增加葡萄糖转运蛋白GLUT4表达,促进糖原合成,提高脂肪酸氧化能力,并降低内脏脂肪含量。
对于代谢综合征的人群,很多研究已经提示,即便体重下降幅度有限,规律有氧运动和抗阻训练也能改善胰岛素抵抗、降低甘油三酯、提高HDL-C,并改善血压和炎症状态。
世界卫生组织推荐成年人每周至少进行150分钟中等强度的有氧运动,但是调查显示,仅约20%–30%的成年人达到推荐水平。
吸烟 饮酒
吸烟和过量饮酒也会显著增加代谢综合征的患病风险。
烟草中的尼古丁会引起血管收缩,升高血压,还会影响胰岛素信号传导,降低胰岛素敏感性。长期吸烟的人,患代谢综合征的风险比不吸烟者高出许多。
过量饮酒(如每日酒精摄入超过20–30 g),影响肝脏的脂代谢,还会提供大量的空热量,容易导致肥胖。研究发现,每天酒精摄入量超过25克,代谢综合征患病风险大大增加。
压力 睡眠
长期精神压力也是一个容易被忽视的危险因素。现代社会生活节奏快,竞争压力大,很多人长期处于慢性应激状态。
慢性压力会导致体内皮质醇水平持续升高,皮质醇是一种糖皮质激素,长期高水平的皮质醇会促进内脏脂肪堆积,升高血糖和血压,还会打乱正常的饮食节律,导致暴饮暴食。这些都会增加代谢综合征的发病风险。
睡眠不足和昼夜节律紊乱同样重要。睡眠时间不足、睡眠质量下降、夜间进食、轮班工作等因素,都会影响胰岛素敏感性、食欲激素、交感神经活性和炎症状态。临床上,睡眠呼吸暂停也常与中心性肥胖、胰岛素抵抗、高血压和血脂异常共同出现。
胰 岛 素 抵 抗
生物标志物层面的中间危险因素。胰岛素抵抗被认为是代谢综合征最核心的病理生理基础。
所谓胰岛素抵抗,就是指身体对胰岛素的反应变得不敏感,胰岛素不能有效地发挥降低血糖、调节脂代谢的作用。身体需要分泌更多的胰岛素才能维持血糖正常,长期高胰岛素血症会进一步加重代谢紊乱。
其 他
慢性低度炎症也是一个重要的中间危险因素,代谢综合征患者体内的促炎细胞因子水平普遍升高,这些炎症因子会干扰胰岛素信号传导,损伤血管内皮功能,促进动脉粥样硬化的发生发展。
脂肪组织功能异常同样关键,当脂肪细胞储存过多的脂肪时,脂肪细胞会发生肥大、缺氧,释放出大量的游离脂肪酸和炎症因子,进入血液循环,影响肝脏、肌肉、胰腺等多个器官的代谢功能。
伴随症状与疾病进展
代谢综合征自然病程呈现出渐进性发展的特点,从正常代谢到明显的代谢综合征,往往需要几年甚至十几年的时间。了解这个发展过程,有助于我们理解在不同阶段应该采取什么样的应对策略。
★ 早期阶段:指标轻度异常,但干预价值最高
在疾病的早期阶段(也就是常说的前驱期),这个阶段往往没有明显的临床症状,很多人体检的时候才会发现一些轻微的异常。
例如:腰围逐渐增加,甘油三酯轻度升高,HDL-C略低,血压处于正常高值,空腹血糖轻度偏高,或者提示脂肪肝。
这个阶段很容易被忽视。因为患者可能没有明显不适,也没有达到糖尿病、高血压或严重高脂血症的诊断标准。但从代谢机制看,胰岛素抵抗、脂肪组织功能异常和慢性炎症可能已经开始出现。
实际上,这个阶段正是干预效果最好的时期,如果能够及时改变生活方式,完全可以逆转病情,阻止它进一步发展。
■ 中期阶段:多项代谢异常叠加,进入明确风险状态
如果在早期阶段没有及时干预,病情就会进展到中期阶段。这个阶段已经出现了明确的代谢异常,达到了代谢综合征的诊断标准。
出现明确高血压(≥130/85 mmHg)、部分患者到糖尿病前期(空腹血糖也开始升高,往往超过5.6 mmol/L)或2型糖尿病、明显高甘油三酯血症、低HDL-C、脂肪肝也常见(约50%–70%的患者合并非酒精性脂肪肝)、睡眠呼吸暂停(尤其是在严重肥胖的患者中,超过一半的人睡觉打呼噜,憋气,频繁缺氧)等问题。
这一阶段的特点是多个系统开始同时受累,相互影响,形成循环。
例如,脂肪肝会进一步加重肝脏胰岛素抵抗,促进VLDL分泌;高甘油三酯和低HDL-C会增加动脉粥样硬化风险;睡眠呼吸暂停会通过夜间缺氧和交感神经激活,加重血压和糖脂代谢异常。
到了中期阶段,虽然已经有了多种代谢异常,但是如果能够积极干预,仍然可以很好地控制病情,延缓甚至阻止并发症的发生。很多人通过积极的生活方式干预,显著改善代谢状态,减少药物的使用。
▲ 晚期阶段:出现器质性损伤和慢病并发症
如果病情继续发展,就会进入晚期阶段,这个阶段已经出现了严重的并发症,往往伴随难以完全逆转的器质性损伤。
例如:2型糖尿病并发症、动脉粥样硬化性心血管疾病、肝病、肾病等。
大量的队列研究已经证实了代谢综合征对健康的严重危害。
一项荟萃分析纳入了超过一百万人的随访数据,结果显示,代谢综合征患者发生心血管事件的风险是正常人群的约2-3倍,发生2型糖尿病的风险更是增加了5倍。
还有研究发现,代谢综合征不仅增加心血管疾病和糖尿病的风险,与多种癌症风险增加相关(证据在不同癌种中强度不一),包括乳腺癌、结肠癌、胰腺癌等。这可能与慢性低度炎症、胰岛素抵抗、性激素水平改变等多种机制有关。
此外,代谢综合征还会增加认知功能下降和痴呆的风险,对老年人的健康构成更大的威胁,而且证据仍在不断积累。
以上自然病程我们可以看出,代谢综合征实际上是肝脏、脂肪组织、肠道、免疫系统和血管系统共同作用后的结果。代谢综合征的预防和干预越早越好。
也正因为如此,下一部分就有必要把血脂异常单独拎出来讨论:为什么在代谢综合征中,血脂异常不仅是诊断指标,更是心血管风险、肠-肝代谢轴和菌群干预价值的关键入口。
血脂异常在代谢综合征中不仅仅是五项诊断指标之一,它实际上承载着代谢状态、胰岛素敏感性、炎症水平和心血管风险的综合信息。理解血脂异常的特点和机制,有助于制定更精准的风险分层和干预策略。
血脂异常在代谢综合征中的核心地位
在代谢综合征的诊断标准中,高甘油三酯和低高密度脂蛋白胆固醇(HDL-C)就已经占据两项核心指标。血脂异常不仅是代谢综合征的重要诊断依据,还能够反映整体代谢紊乱的严重程度及其潜在风险,同时也是连接其他代谢紊乱与心血管终点事件的关键环节。
临床流行病学显示:
血脂异常不仅是代谢综合征的结果,也可能在代谢综合征的发生发展中起到推动作用。
血脂异常与心血管风险:独立且显著
研究证实:
胰岛素抵抗:血脂异常的驱动力
这要从代谢综合征的病理生理机制说起。代谢综合征的核心是胰岛素抵抗,胰岛素抵抗不仅会影响血糖代谢,还会直接影响脂肪组织的脂解过程。
当胰岛素抵抗发生时,脂肪组织对胰岛素的抗脂解作用不敏感,导致脂肪组织持续释放大量的游离脂肪酸进入血液循环。这些游离脂肪酸被肝脏摄取之后,就会刺激肝脏合成更多的甘油三酯和极低密度脂蛋白,导致血脂异常的发生。同时,胰岛素抵抗还会影响脂蛋白脂酶的活性,影响甘油三酯的清除,进一步加重高甘油三酯血症。
从这个角度我们可以看出,是胰岛素抵抗的重要代谢表现之一,它反映了全身代谢紊乱的严重程度。因此,血脂异常的检测和管理,应该成为代谢综合征防控的核心环节之一。
代谢综合征——脂质三联征
代谢综合征血脂异常具有高度特征性,被称为脂质三联征或致动脉粥样硬化血脂谱。
注:因为这种血脂谱具有很强的致动脉粥样硬化作用,心血管危害远超单纯的高胆固醇血症。
具体来说,代谢综合征的脂质三联征包括三个主要特点:
1、高甘油三酯血症
大部分代谢综合征患者会出现空腹甘油三酯(TG)升高,一般诊断标准是空腹甘油三酯≥1.7 mmol/L。
甘油三酯升高是代谢综合征血脂异常最常见的表现,这和我们前面提到的游离脂肪酸(FFA)释放增加、肝脏合成极低密度脂蛋白(VLDL)增加密切相关。
高甘油三酯血症不仅仅本身是一个危险因素,更重要的是,高甘油三酯血症往往伴随着其他脂蛋白的异常改变,共同导致动脉粥样硬化的发生发展。
2、低高密度脂蛋白胆固醇血症
代谢综合征患者大多出现高密度脂蛋白胆固醇降低。诊断标准:
男性<1.0 mmol/L,女性<1.3 mmol/L。
高密度脂蛋白胆固醇被我们称为”好胆固醇“,高密度脂蛋白胆固醇降低,这种保护作用就会减弱,动脉粥样硬化的风险就会增加。
注:高密度脂蛋白胆固醇负责将胆固醇从周围组织转运回肝脏进行代谢和排泄,这个过程叫做胆固醇逆向转运,它具有抗动脉粥样硬化的作用。
在代谢综合征患者中,高密度脂蛋白胆固醇降低往往伴随着甘油三酯升高同时出现,这两者之间存在密切的代谢联系。当甘油三酯升高时,胆固醇酯转运蛋白活性增加,会促进高密度脂蛋白中的胆固醇转移到极低密度脂蛋白和低密度脂蛋白中,导致高密度脂蛋白胆固醇水平降低。
3、小而密低密度脂蛋白比例升高
很多人都知道低密度脂蛋白胆固醇是”坏胆固醇“,但其实低密度脂蛋白并不是均匀的,它还可以根据颗粒大小分为不同的亚型:
其中小而密的低密度脂蛋白致动脉粥样硬化作用远远强于大而轻的低密度脂蛋白。
原因是:小而密LDL颗粒更易氧化、穿透血管内皮并形成泡沫细胞,即使总LDL-C正常,也显著增加心血管事件风险。
这种协同效应使代谢综合征患者的血脂异常风险复杂而显著
多项大型临床研究已经证实,在部分研究中,TG/HDL比值或非HDL胆固醇等指标对心血管风险具有更好的预测能力。
对于代谢综合征患者来说,我们不能仅仅关注总胆固醇和低密度脂蛋白胆固醇,还需要关注甘油三酯和高密度脂蛋白胆固醇,在有条件情况下可进一步评估(如ApoB或LDL颗粒特征)。
传统干预策略
目前临床上对于代谢综合征相关的血脂异常,主要的干预策略包括生活方式干预和药物治疗两大类。这两种策略都取得了一定的效果,但是也存在明显的局限性,也需要寻求新的干预方式。
生活方式干预是基础
包括控制饮食、增加运动、减轻体重、戒烟限酒等。健康的生活方式确实可以改善血脂异常,也可以改善胰岛素敏感性。
但是现实问题在于,生活方式干预的长期依从性普遍较低(多项研究显示仅有少部分患者能够长期坚持)。大多数人在坚持几个月之后都会逐渐回到原来的不良生活习惯。这其中有很多原因,比如工作忙、压力大、社交应酬多、难以抵制美食的诱惑等等。所以,仅仅依靠生活方式干预,很难长期有效地控制血脂异常。
药物治疗是目前临床上控制血脂异常的主要手段
——高胆固醇血症
首选的药物是他汀类药物。
大量的临床试验证实,他汀可以抑制胆固醇合成,显著降低低密度脂蛋白胆固醇,减少心血管事件。
但是,他汀类药物也存在局限性。对甘油三酯升高和低HDL-C的改善相对有限,尤其是对于高甘油三酯血症和低高密度脂蛋白胆固醇血症,他汀的效果有限。还有少数患者不能耐受他汀,服用他汀之后会出现肌肉疼痛、乏力,甚至肝功能异常,这些不良反应导致患者不得不停药。
——高甘油三酯血症
临床上常用的药物是贝特类药物。
贝特可以有效降低甘油三酯,升高高密度脂蛋白胆固醇。
但是贝特类药物也存在问题,它的主要副作用是会增加他汀的肌肉不良反应,与部分他汀联合使用时可能增加肌病风险。而且,贝特类药物虽然可以改善血脂谱,但是对于减少心血管事件的获益证据并不像他汀那么充分。
除了他汀和贝特,还有烟酸、依折麦布、PCSK9抑制剂等其他调脂药物,但是这些药物也各有各的局限性。
更深层次的问题在于,主要针对血脂异常这一表型进行干预,而对上游代谢紊乱(如胰岛素抵抗)的直接作用有限。
代谢综合征相关的血脂异常,根源在于胰岛素抵抗、脂肪组织功能异常、肠道菌群紊乱等深层次的问题,传统药物并没有针对这些根本原因进行干预,所以往往需要长期甚至终身服药,停药之后血脂很容易再次升高。
这种现状促使科学界不断寻找新的治疗靶点,而肠道微生物组正是目前看来最具前景的方向之一。
近二十年来的研究已经证实,肠道微生物组在脂质代谢中发挥着非常重要的作用,很多代谢综合征患者的血脂异常,都和肠道微生物组的异常改变密切相关。通过调节肠道微生物组来改善血脂异常,有望从根本上解决问题,为代谢综合征的治疗提供全新的思路。
在血脂代谢领域,大量的研究已经明确证实,肠道微生物群通过多种不同的机制影响宿主的脂质吸收、合成、转运和代谢,这些机制共同作用,最终影响血脂水平。目前学术界已经比较明确的核心机制主要有五个方面:
10.1007/S11154-019-09512-0
机制一:短链脂肪酸(SCFA)的调控作用
短链脂肪酸是肠道微生物群对宿主代谢产生影响的重要信号分子,也是目前研究最为深入、证据最充分的机制之一。
肠道细菌可以产生各种各样的糖苷水解酶,能够分解膳食纤维,将它们发酵产生短链脂肪酸。
所以说,膳食纤维对健康的好处,很大一部分是通过短链脂肪酸实现的。
短链脂肪酸主要通过三条途径调控血脂代谢。
途径一 | 脂肪组织:抑制脂解与炎症
第一条途径是通过G蛋白偶联受体介导的信号通路,抑制脂肪组织的脂肪分解。
在肠道上皮细胞、免疫细胞、脂肪细胞上都表达着两种特殊的G蛋白偶联受体,叫做GPR41和GPR43,这两种受体的配体是短链脂肪酸。
当短链脂肪酸和这些受体结合之后,会激活细胞内的信号通路,产生一系列生理效应。其中一个很重要的效应就是抑制脂肪组织中的脂肪分解。
——抑制脂肪分解,改善血脂
脂肪分解是脂肪细胞把储存的甘油三酯分解成游离脂肪酸释放到血液中,这个过程如果过度活跃,就会导致血液循环中游离脂肪酸增加,过多的游离脂肪酸被肝脏摄取之后,就会刺激肝脏合成更多的甘油三酯和极低密度脂蛋白,导致血脂升高。
而短链脂肪酸通过激活GPR41/43受体,可以抑制这个过度活跃的脂解过程,减少游离脂肪酸的释放,从而减轻肝脏的脂代谢负担,降低血脂水平。
——抗炎,改善胰岛素敏感性
肥胖和代谢综合征患者的脂肪组织中会有大量的巨噬细胞浸润,这些巨噬细胞会释放促炎细胞因子,这些促炎细胞因子会进一步加重胰岛素抵抗,促进脂肪分解。
短链脂肪酸通过激活GPR43受体,可以抑制巨噬细胞的促炎激活,减少促炎细胞因子的释放,改善脂肪组织的慢性炎症,从而改善胰岛素敏感性,间接改善脂代谢。
途径二 | 肝脏:调节胆固醇与脂肪酸合成
短链脂肪酸产生后,通过肠道吸收,经门静脉进入肝脏,其中丙酸的作用最为显著。
——丙酸直接抑制关键酶
研究发现,丙酸可以直接抑制肝脏胆固醇合成的关键限速酶——HMG-CoA还原酶(3-羟基-3-甲基戊二酰辅酶A还原酶),这一酶也是他汀类药物主要靶点。
通过抑制HMG-CoA还原酶,丙酸能够减少肝脏内源性胆固醇合成,从而降低血液中的胆固醇水平。
动物实验研究证实,给高脂饮食喂养的小鼠补充丙酸,可以显著降低血清总胆固醇和低密度脂蛋白胆固醇水平。
编辑
——丙酸调控脂肪酸合成与甘油三酯降低
研究发现,丙酸可以抑制肝脏中脂肪酸合成关键酶ACC和FAS的表达,减少从头合成脂肪酸,从而减少肝脏甘油三酯的合成,降低血清甘油三酯水平。
途径三 | 肠道激素:调节胰岛素敏感性与食欲
第三条途径通过调节肠道激素分泌,改善胰岛素敏感性,减少食欲。
肠道中的L细胞能够分泌一类重要的肠道激素:
这两种肠道激素都有很重要的代谢调节作用:
研究发现,短链脂肪酸能够刺激肠道L细胞分泌更多的GLP-1和PYY,从而发挥这些有益的代谢效应。胰岛素敏感性改善之后,脂代谢也会随之改善,游离脂肪酸释放减少,肝脏合成甘油三酯也会减少。
食欲减少有助于控制体重,减轻肥胖,进一步改善代谢。
机制二:影响胆汁酸代谢
胆汁酸是肝脏合成的重要分子,主要生理功能是帮助膳食脂肪的消化吸收。肝脏合成的胆汁酸储存在胆囊中,吃饭后胆囊收缩,将胆汁酸排入肠道帮助脂肪乳化和吸收。大约95%的胆汁酸在回肠末端被重新吸收,通过门静脉回流至肝脏,形成肠-肝循环。
过去人们认为胆汁酸仅仅是一种消化液,但近二十年来的研究表明,它同时也是重要的信号分子,能够激活核受体和G蛋白偶联受体,调控糖脂代谢,对全身代谢具有深远影响。
而肠道微生物群在胆汁酸代谢中发挥关键作用,能够通过多种酶改变胆汁酸组成和结构,进而影响其信号功能,最终调控宿主脂质代谢。
1、肠道菌群通过胆汁盐水解酶对胆汁酸解偶联
肝脏合成的胆汁酸,在分泌到胆汁中的时候,会和甘氨酸或者牛磺酸结合,形成结合型胆汁酸。结合型胆汁酸才能发挥正常的生理功能。
——胆汁酸的解偶联过程
当胆汁酸进入肠道之后,肠道中的很多细菌,主要是乳杆菌、双歧杆菌这些有益菌,能够产生一种叫做胆汁盐水解酶(简称BSH)的酶,这种酶能够把结合型胆汁酸中的甘氨酸或者牛磺酸水解下来,变成游离型胆汁酸。
——解偶联之后的游离型胆汁酸和结合型胆汁酸有什么不同?
主要的区别在于它们在肠道的重吸收效率。
游离型胆汁酸更容易被肠道被动重吸收,但是也有一部分会随着粪便排出体外。
如果BSH活性发生改变,就会影响胆汁酸的肠肝循环效率,改变胆汁酸的返回量,从而影响肝脏中胆汁酸的合成。
2、肠道菌群通过FXR信号调控肝脏脂蛋白合成
FXR(法尼醇X受体)是一种核受体,它主要在肝脏和肠道表达,它的配体就是胆汁酸。
研究发现,肠道微生物改变导致胆汁酸组成异常,会过度激活肠道FXR,FXR激活之后会通过循环中的FGF15/19(成纤维细胞生长因子15/19)信号,影响肝脏的脂代谢,促进VLDL合成,导致高甘油三酯血症。
3、通过TGR5受体激活增加能量消耗
TGR5是一种G蛋白偶联受体,它在棕色脂肪组织中高表达。
研究发现,代谢综合征患者往往次级胆汁酸合成减少,TGR5激活不足,能量消耗减少,这也会促进肥胖和血脂异常的发生。
机制三:内毒素血症与慢性低度炎症
内毒素血症和慢性低度炎症是连接肠道菌群紊乱与代谢综合征的一个核心机制,这个机制也是最早被发现和研究比较透彻的机制。
革兰氏阴性细菌的细胞壁外面有一种成分叫做脂多糖,简称LPS,也称为内毒素。
<向上滑动阅览>
还有研究发现,通过饮食干预改善肠道菌群,降低内毒素血症,可以显著改善血脂异常,进一步证实了内毒素血症在血脂异常中的介导作用。
机制四:胆碱代谢与TMAO途径
每天我们从膳食中摄入胆碱,尤其在鸡蛋、动物肝脏、红肉等食物中含量较高。摄入的胆碱大部分被吸收利用,但一部分进入大肠,由肠道细菌代谢。特定菌群产生的胆碱三甲胺裂解酶能将胆碱转化为三甲胺(TMA),随后通过门静脉进入肝脏。肝脏中的FMO3(黄素单加氧酶3)将TMA氧化为TMAO。
TMAO影响胆固醇和血脂代谢主要通过以下途径。
1、抑制胆固醇逆向转运
首先是抑制胆固醇逆向转运,减少胆固醇外流。前面提到过,胆固醇逆向转运是把胆固醇从周围组织包括动脉粥样斑块转运回肝脏代谢排泄的过程,这个过程是对抗动脉粥样硬化的重要保护机制。这个过程中,ABCA1和ABCG1这两个转运蛋白发挥着关键作用,它们位于巨噬细胞表面,能够把细胞内多余的胆固醇转运出来,交给高密度脂蛋白。
研究提示TMAO可能通过下调巨噬细胞ABCA1和ABCG1的表达,抑制胆固醇外流,从而影响胆固醇逆向转运,促进动脉粥样硬化的发生。
2、促进泡沫细胞形成
第二条途径主流假说是通过促进泡沫细胞形成。泡沫细胞是动脉粥样硬化斑块中最早出现的细胞成分,它是巨噬细胞吞噬了大量的氧化低密度脂蛋白之后形成的。
部分研究显示TMAO能够上调巨噬细胞表面清道夫受体SR-A1的表达,SR-A1能够识别并吞噬氧化低密度脂蛋白,SR-A1表达增加之后,巨噬细胞吞噬更多的氧化低密度脂蛋白,更容易形成泡沫细胞。泡沫细胞大量形成,可能是动脉粥样硬化发生发展的关键步骤。
3、抑制胆汁酸合成
胆固醇7α-羟化酶,也就是CYP7A1,是肝脏合成胆汁酸的关键限速酶。
研究显示TMAO能够抑制肝脏CYP7A1的表达,导致胆汁酸合成减少。胆固醇是合成胆汁酸的原料,胆汁酸合成减少,意味着胆固醇消耗减少,更多的胆固醇留在体内,同时,胆汁酸排泄减少也会影响胆固醇的平衡,导致血液中胆固醇水平升高。
<向上滑动阅览>
从干预的角度来看,如果我们能够抑制肠道细菌产生TMAO,就能够降低血浆TMAO水平,从而降低心血管风险。
目前已经有一些研究在探索这个方向,比如使用特异性的小分子抑制剂抑制胆碱三甲胺裂解酶的活性,或者使用噬菌体特异性地清除产TMAO的细菌,这些研究都取得了一些初步的成果,未来有可能开发出新的降脂和抗动脉粥样硬化药物。
机制五:膳食脂肪吸收调控
除了我们前面介绍的这四个机制,肠道菌群还能够直接影响肠道上皮细胞对膳食脂肪的吸收效率,以及乳糜微粒的形成和分泌过程,这个直接的调控作用对血脂水平也有着重要的影响。
脂肪吸收
吃进去的脂肪,需要经过一系列的步骤才能被身体吸收利用。
肠道菌群和脂质通过菌群代谢物、胆汁酸和免疫细胞吸收
编辑
脂蛋白脂酶不仅存在于脂肪组织和肌肉组织的血管内皮表面,在肠道上皮细胞的表面也有表达,它能够帮助分解乳糜微粒中的甘油三酯,促进脂肪酸的吸收。
研究发现,肠道菌群代谢产生的一些短链脂肪酸和其他代谢产物,能够影响肠道上皮细胞脂蛋白脂酶的活性,如果有害菌过度生长,产生的一些有害代谢产物会增加脂蛋白脂酶的活性,导致更多的膳食脂肪被吸收,过多的脂肪吸收之后,会导致血液中甘油三酯升高,也会增加脂肪堆积。
肠道菌群还能够调节肠道通透性,影响乳糜微粒进入循环。肠道菌群紊乱会损伤肠道屏障,增加肠道通透性,不仅LPS和细菌内毒素更容易进入血液循环,乳糜微粒进入循环也会增加,更多的膳食脂肪被吸收进入血液,导致血脂升高。同时,肠道通透性增加还会引起慢性低度炎症,加重胰岛素抵抗和血脂异常,形成恶性循环。
近年来,大规模肠道微生物组组学研究揭示了代谢综合征患者特有的菌群模式,尤其在伴血脂异常的人群中表现明显。这些特征不仅是疾病结果,还可能参与代谢综合征的发生和发展。
α多样性显著降低
α多样性是衡量肠道微生物群落结构的一个常用指标,它反映了肠道中物种的丰富度(也就是有多少种不同的细菌)和均匀度(也就是不同细菌的丰度分布是否均匀)。
大量的研究一致发现,代谢综合征患者的肠道菌群α多样性显著降低。
在代谢综合征伴血脂异常中,肠道微生物群的变化通常包括整体多样性下降以及有益菌的缺失。
产短链脂肪酸菌减少
多样性下降通常伴随产短链脂肪酸菌减少,如丁酸生成菌减少,使肠道调节胰岛素敏感性、脂质代谢以及炎症信号的能力下降,调节影响甘油三酯和 HDL 的炎症信号的能力减弱。
同时,多样性丧失常伴胆汁酸代谢紊乱和肠道屏障功能受损,导致低度全身性炎症增加,从而强化血脂异常和胰岛素抵抗的循环。
关键有益菌属/菌种的特征性变化
属和种的水平,代谢综合征患者也呈现出特征性的变化,一些有益菌降低,一些有害菌升高,这些变化共同推动了血脂异常的发生发展。
⭐ 有益菌显著减少
✦Faecalibacterium prausnitzii(普拉梭菌)
【产丁酸,抗炎,改善肠屏障,丰度下降 → 丁酸减少 → 炎症增加 → 胰岛素抵抗和血脂异常加重】
普拉梭菌是人体肠道中丰度最高的产丁酸菌之一,它能够发酵膳食纤维产生大量的丁酸,丁酸不仅是肠道上皮细胞的主要能量来源,还具有抗炎作用,能够改善肠道屏障功能,减少炎症反应。
大量研究一致发现,代谢综合征患者中普拉梭菌的丰度降低。普拉梭菌减少,丁酸产生减少,肠道屏障功能受损,炎症增加,这些都会加重胰岛素抵抗和血脂异常。
✦Roseburia (罗氏菌属)
【产SCFA,丰度下降 → SCFA生成减少 → 代谢保护作用减弱】
罗斯氏菌属也是非常重要的产短链脂肪酸的细菌,它也能够发酵膳食纤维产生大量的丁酸和乙酸。罗斯氏菌减少,同样会导致短链脂肪酸产生减少,对代谢的保护作用减弱。
✦ Akkermansia muciniphila(嗜黏蛋白阿克曼菌,常简称它为Akk菌)
【增强肠屏障、改善胰岛素敏感性,降低甘油三酯】
Akk菌是一种专门降解肠道黏液层中黏蛋白的细菌,它对维护肠道屏障功能非常重要。
研究发现,Akk菌能够增强肠道屏障完整性,减少内毒素血症,还能够改善胰岛素敏感性,降低体重和血脂。
动物实验研究发现,给肥胖小鼠补充Akk菌,能够降低血清甘油三酯,改善胰岛素抵抗,减轻体重,效果非常显著。
✦ Christensenellaceae(克里斯滕森菌科)
【丰度与瘦体型及代谢健康正相关,代谢综合征患者显著减少】
这个科的细菌在健康人肠道中普遍存在。
多项研究发现,克里斯滕森菌科的丰度和代谢健康指数呈强正相关,和BMI、甘油三酯呈负相关。
代谢综合征患者中克里斯滕森菌科的丰度显著降低。有意思的是,研究还发现克里斯滕森菌科的丰度和瘦体型相关,携带克里斯滕森菌科多的人,不容易发胖,代谢也更健康。
其它还有:
⭐ 有害菌显著增加
✦Escherichia/Shigella(大肠杆菌/志贺氏菌属)
【LPS产生增加 → 内毒素血症 → 慢性炎症】
这些细菌属于变形菌门,是革兰氏阴性条件致病菌,它们的细胞壁含有大量的LPS。
代谢综合征患者中这些细菌的丰度显著升高,它们产生大量的LPS,更容易导致内毒素血症和慢性炎症。
✦ Desulfovibrio(脱硫弧菌属)
【高浓度硫化氢损伤肠屏障 → 炎症 → 代谢紊乱】
脱硫弧菌是一种硫酸盐还原菌,它能够还原硫酸盐产生硫化氢。硫化氢在低浓度的时候有一定的生理作用,但是高浓度的硫化氢对肠道上皮细胞有毒性作用,能够损伤肠道屏障,增加肠道通透性,还能够抑制线粒体呼吸,影响肠道上皮细胞的能量代谢,还会加重炎症,促进代谢紊乱。
研究发现,代谢综合征患者中脱硫弧菌的丰度显著升高,而且脱硫弧菌丰度和血压、甘油三酯呈正相关。
✦Clostridium clusters(一些梭菌属的细菌)
【影响胆汁酸代谢 → 血脂异常】
特定的一些梭菌集群和胆汁酸代谢紊乱相关,它们能够改变胆汁酸的代谢,影响胆汁酸的组成和信号功能,进而影响血脂代谢。这些梭菌过度生长,会导致胆汁酸代谢重编程,促进血脂异常的发生。
其它还有:
功能基因谱的特征变化
代谢综合征患者的微生物群功能能力下降,表现为:
这些功能性变化揭示了代谢综合征肠道微生态对血脂异常、胰岛素抵抗及慢性低度炎症的上游贡献。理解这些特征性变化,可以为精准干预提供明确靶点。
通用干预的局限性
常规药物在代谢综合征合并血脂异常的患者中疗效有时不理想,因为无法考虑影响甘油三酯、HDL 和全身炎症的特定肠道-胆汁酸-代谢物信号回路。
热量控制难以修复肠道生态
许多标准的健康饮食方法强调热量控制或食物限制(广泛限制),但它们可能无法可靠地恢复驱动胆汁酸受体信号(FXR/TGR5)和肝脂调控的肠道生态系统功能。
如果一个人的肠道菌群纤维发酵能力低且多样性减少,仅仅添加一些纤维或做出模糊的饮食改进,通常无法有效改善肠道胆汁酸转化模式,也难以调节VLDL生成或提升胰岛素敏感性。
低度慢性炎症难以消除
即便进行了饮食调整或生活方式干预,低度慢性炎症在代谢综合征患者体内仍可能持续存在。
这主要与短链脂肪酸产量下降和肠道屏障受损有关,导致内毒素(如LPS)进入循环,维持炎症。持续的炎症环境不仅影响脂质代谢,还强化胰岛素抵抗,使甘油三酯升高、HDL下降的血脂异常难以改善。
通用干预很少针对屏障完整性和 SCFA 生成的根本驱动因素(如持续可发酵的纤维数量/品种、富含多酚的植物摄入量,以及对发酵或益生元食品的个体耐受性)。如果不解决这些功能缺陷,脂质水平的改善可能会趋于平稳,因为炎症和胰岛素抵抗环境持续促进动脉粥样状、富含 ApoB 的脂蛋白谱。
个体差异决定效果
最重要的是一刀切的建议往往忽视了微生物生态和饮食反应中的个体间差异。
两个人可能都吃得更好,但他们的基线菌群组成、胆汁酸库、运输时间和代谢反应可能导致截然不同的结果。帮助一个人的微生物组产生 SCFA 或改善胆汁酸信号的机制,对另一个人可能影响不大,甚至因不耐受而加重症状。
如果没有基于功能标志物(如纤维摄入质量、炎症状态、血糖反应以及特定益生元/发酵策略耐受性)进行个性化调整,通用方案就不太可能在甘油三酯/HDL 和心血管代谢风险方面产生持久改善。
风险分层与早期预警
代谢综合征的发生发展是一个漫长的过程,从正常代谢到明确的代谢综合征,往往需要几年甚至十几年的时间。
肠道菌群变化:早于临床症状的预警信号
传统的危险因素,比如BMI、腰围、血压、血糖、血脂,这些都是在代谢异常已经发生之后才能发现异常。
而肠道菌群紊乱往往早于临床症状和生化异常的出现,也就是说,还没有出现血糖升高、血压升高、明确的血脂异常的时候,肠道菌群已经发生了改变。
风险分层与预测模型
基于这个特点,肠道菌群特征可以用于代谢综合征的风险分层和早期预警。
多项研究以及谷禾健康已经构建了基于肠道菌群特征的代谢综合征预测模型,这些模型的预测性能如何呢?
研究发现,基于肠道菌群特征构建的预测模型,对代谢综合征的曲线下面积(AUC)可以达到0.83-0.89,这个预测精度优于传统的危险因素,比如BMI、年龄这些指标。如果把肠道菌群特征和传统危险因素结合起来,预测精度还能进一步提高。
这个发现有什么临床意义呢?
它意味着我们可以通过检测肠道菌群,在疾病的早期阶段,甚至在还没有出现生化异常的时候,就识别出代谢综合征的高风险人群。
提前干预与疾病分期监测
研究发现,在糖耐量正常人群中,肠道微生物变化可比血糖异常提前3–5年被检测到。
也就是说,如果现在血糖、血脂都还正常,但是肠道菌群已经出现了特征性的改变,那么未来几年发生代谢综合征的风险就会显著升高,这个时候就可以提前进行干预,通过改变饮食、增加运动、补充益生菌益生元等方法,调整肠道菌群,阻止或者延缓代谢综合征的发生。这就是真正的上医医未病,预防重于治疗。
除了预测发病风险,肠道菌群变化还能够反映代谢综合征的疾病分期和严重程度。
研究发现,随着代谢综合征从早期到中期再到晚期,肠道菌群的紊乱程度也逐渐加重,α多样性逐渐降低,特征性改变也越来越明显。
因此我们可以通过检测肠道菌群,对疾病进展情况进行监测,了解疾病处于什么阶段,帮助我们制定更合适的干预策略。
个性化干预方案制定
现在医学界越来越强调精准医学,也就是根据每个人不同的特征,制定个性化的干预方案,而不是千人一方。肠道菌群检测就是实现个性化干预非常重要的一个工具,因为不同的人肠道菌群特征不一样,适合的干预方法也不一样。
例如,产短链脂肪酸菌缺乏。
如果肠道中产丁酸、产乙酸的有益菌明显减少,那么适合补充益生元,比如菊粉、低聚果糖这些益生元,它们能够选择性地促进这些有益菌的生长,增加短链脂肪酸产生,改善血脂代谢。
例如,Akkermansia muciniphila缺乏。
如果Akk菌丰度明显降低,那么可以补充特定的益生菌,或者吃一些能够促进Akk菌生长的食物,比如石榴、蔓越莓这些富含多酚的食物,能够促进Akk菌生长,改善肠道屏障功能,降低内毒素血症,改善血脂。
治疗反应预测与监测
评估药物干预效果
肠道菌群特征不仅仅能够帮助我们制定干预方案,还能够预测药物和生活方式干预的效果,通过肠道菌群特征预测对某种治疗方法的反应好不好,这对于临床治疗决策有辅助作用。
例如他汀类药物,他汀是临床上最常用的降脂药物,但是我们前面提到过,部分患者对他汀反应不佳,所以谷禾也一直在和临床推进合作看有没有办法在用药之前就预测哪些人反应好,哪些人反应不好呢?
研究发现,肠道菌群特征确实能够预测他汀的降脂疗效,特定的菌群特征。
评估减肥效果
减重,无论是通过生活方式减重还是减重手术,不同的人效果差异很大。
研究发现,基线肠道菌群中普雷沃氏菌/拟杆菌比例高的患者,减重干预的效果更好,体重减轻更多,血脂改善也更明显。另一方面,基线Akk菌丰度可以作为减重效果的预测因子,如果AKK菌丰度比较低,那么可能需要更强化的干预,或者先补充Akk菌,提高减重效果。
动态监测肠道菌群评估
在干预过程中,还可以通过动态监测肠道菌群来评估干预效果。干预之后,如果肠道菌群多样性恢复了,有益菌丰度增加了,有害菌丰度减少了,这些都可以作为代谢改善的早期生物标志物。
这些变化往往出现在血脂、血糖这些生化指标改善之前,所以我们可以通过监测菌群变化,早期了解干预是否有效,如果干预没有改善菌群,帮忙用户及时调整干预方案,避免无效治疗。
并发症风险评估
特定的肠道微生物标志物和代谢综合征并发症的风险相关,通过检测这些标志物,可以辅助评估并发症的发生风险,帮助我们进行风险分层和预防。
举例:和并发症风险有可能相关的指标:
次级胆汁酸升高
次级胆汁酸是肠道细菌代谢初级胆汁酸产生的,粪便次级胆汁酸升高和非酒精性脂肪肝的发生风险密切相关,如果有代谢综合征,同时粪便次级胆汁酸升高,那么可能需要提前进行筛查和干预。
<来源:谷禾健康肠道菌群检测数据库>
产短链脂肪酸菌减少
短链脂肪酸对代谢有保护作用,产短链脂肪酸菌减少,代谢性疾病进展的风险升高。所以检测发现产短链脂肪酸菌明显减少,那么需要更积极的生活方式干预,必要的时候补充益生元或者益生菌,增加短链脂肪酸产生,降低糖尿病等代谢疾病风险。
通过检测这些微生物标志物,我们可以更精准地评估不同并发症的风险,然后进行针对性的预防和干预。
一般支持策略
代谢综合征伴血脂异常越来越多地与肠道微生物组调节胆汁酸、炎症色调和代谢信号传递有关。一个核心支持策略是通过增加来自多样、最少加工的植物性食物(如豆类、全谷物、水果、蔬菜)的膳食纤维来改善微生物生态。
膳食纤维
膳食纤维为有益发酵菌提供能量,促进短链脂肪酸生成,如丁酸。丁酸可强化肠道屏障,减少循环内毒素(LPS),降低低度慢性炎症,从而改善胰岛素敏感性,减轻甘油三酯升高和HDL下降。可选益生元来源包括大蒜、洋葱、韭葱、芦笋、菊苣根/菊粉、青香蕉等,同时限制高度加工食品。
支持胆汁酸信号(天然食物)
由于肠道微生物也会调节胆汁酸,支持正常胆汁酸信号传递也是关键方法。某些细菌群落产生的二级胆汁酸可以与 FXR 和 TGR5 等受体相互作用,这些受体会影响肝脂的合成、葡萄糖处理和能量平衡。富含植物多酚和其他微生物群可及化合物的饮食可以促进更有利的细菌转变,并支持胆汁酸池,更好地支持代谢调节。
对于某些人来说,添加天然食物可能进一步增强微生物多样性和代谢反应性。每天通过多种植物(浆果、柑橘、石榴、绿叶蔬菜、十字花科蔬菜、特级初榨橄榄油、可可)增加多酚,以改善胆汁酸信号和微生物多样性。
长期饮食模式(减少加工食品)
持续减少超加工食品和过量添加糖的摄入,有助于防止菌群失调引发的动脉粥样性血脂模式(甘油三酯升高、HDL降低、非HDL/LDL升高)。
限制添加糖和精制淀粉(含糖饮料、甜食、白面包/糕点)的摄入,以减少甘油三酯负担,并限制微生物组驱动的炎症信号。
全食物饮食、逐步增加纤维摄入、改善胰岛素敏感性的生活方式,可长期强化肠-肝代谢轴,改善炎症标志物,帮助血脂向更健康的心血管风险水平转变。
如果能耐受,可以考虑发酵食品(如酸奶/克菲尔加活菌、酸菜、泡菜、天贝),以增强有益微生物并减少低度炎症。
健康脂肪与运动
选择健康脂肪而非饱和脂肪/反式脂肪(橄榄油、坚果、种子、牛油果;若耐受时可食用脂肪鱼类),以改善动脉粥样形成的血脂水平。
优先进行规律的体育活动(有氧+抗阻训练),减少久坐时间,以改善胰岛素敏感性和降低甘油三酯。
睡眠、压力管理
确保充足睡眠并管理压力(例如7-9小时睡眠、正念/呼吸/锻炼),以减少炎症,避免加重胰岛素抵抗和脂质指标。
个体化监测原则
由于胆汁酸代谢和肠道代谢物因人而异,应通过饮食和生活方式调整改善肠道功能,而尽量不要直接用补充剂替代饮食。益生菌或合生菌选择需依据有代谢或抗炎证据的菌株,并考虑剂量及个体反应。
对血脂异常患者,应避免在未监测的情况下过度干预,必要时结合血脂、血糖及炎症指标评估(如可用的CRP、血浆甘油三酯监测),尤其当存在他汀类药物或胆汁酸干预时。
复测/监测
复测的重要性和时间安排
对于伴有血脂异常的代谢综合征患者,在进行干预后进行复测是评估效果的重要环节。常见干预包括增加膳食纤维、提升植物多样性、摄入富含多酚的食物,有时还包括适量发酵食品。
一般建议干预8–12周后复测代谢和血脂标志物,以捕捉甘油三酯、HDL及非HDL/LDL的趋势性变化。这段时间足以让肠道代谢产物(如SCFA)和胆汁酸信号发生适应性改变,从而更明显地反映临床效果。
如果患者同时在进行降脂或胰岛素敏感性优化治疗,复测时间可由临床医生根据具体情况调整,但通常仍建议在同一个8–12周周期内进行安全性和有效性评估。
复测如何指导干预?
复测不仅评估血脂变化,还可用于验证干预模式是否改善肠道介导的炎症和胆汁酸代谢。需要注意的是,复测可以结合其他临床实验室指标解读结果。
最终目标是通过动态监测,确认肠道驱动的代谢物变化与甘油三酯、HDL及整体心血管代谢风险持续改善之间的相关性,而非依赖单次检测数据。这样可以为后续干预优化和个性化调整提供科学依据。
新兴治疗策略
近年来,针对代谢综合征和血脂异常的微生物干预研究呈现多条前沿方向,涵盖从益生菌到后生元的多种策略。
下一代益生菌
传统的益生菌主要是乳杆菌、双歧杆菌这些,而下一代益生菌是从健康人肠道中分离出来的,对代谢有明确益处的特定菌种,目前研究最多的就是Akkermansia muciniphila、Eubacterium hallii。
Akk菌我们前面多次介绍过,它能够改善肠道屏障,降低内毒素血症,改善胰岛素抵抗和血脂。
目前Akk菌已经进入了II期临床试验,初步结果显示,补充Akk菌能够显著降低代谢综合征患者的体重指数和甘油三酯,改善胰岛素抵抗,而且安全性很好,没有明显的不良反应。
Eubacterium hallii 是一种产丁酸菌,它也能够改善糖脂代谢,目前也在进行临床试验。相信在未来几年,这些下一代益生菌就会上市,给代谢综合征患者带来新的治疗选择。
粪菌移植(FMT)
粪便菌群移植就是把健康供体的肠道菌群移植到患者肠道内,重建患者正常的肠道菌群。
目前已经完成了一些小规模的研究,结果显示,健康供体FMT能够改善代谢综合征患者的胰岛素敏感性和血脂谱,部分患者改善效果能够维持三个月以上。
当然,目前FMT还存在一些问题,比如长期效果还不明确,供体菌群的质量控制,安全性等问题都还需要进一步研究。
未来通过把多种明确的有益菌按比例混合,代替完整的粪便,以解决供体质量控制和安全性问题,提升临床可行性,这个方向也是很有前景的。
噬菌体靶向调控
噬菌体干预通过特异性攻击目标有害细菌(如产TMAO菌),精准清除有害菌而不影响其他有益菌。相比广谱抗生素,这种方法副作用更小,精确性高。
动物实验显示,噬菌体可有效降低产TMAO菌群水平,减少血浆TMAO并降低动脉粥样硬化风险。
这个方向未来很可能开发出全新的治疗方法,精准地调节肠道菌群,改善血脂异常。
后生元干预
后生元不是活菌,而是细菌产生的有益代谢产物,或者细菌本身的一些成分,比如短链脂肪酸、特定的胆汁酸、细菌细胞壁成分等等。
后生元和活菌相比,有很多优势:
多个后生元产品已进入临床试验,未来几年有望面市。
除了这四个主要方向,还有很多其他的策略在研究之中,比如精准化营养饮食干预、益生菌+益生元的合生元、膳食益生元促进特定有益菌生长等等,这些策略都在进行研究,未来会有更多的干预方法可供选择。
整合医学模式
未来代谢综合征的管理,预测会走向多组学整合的精准医学模式,也就是整合多个层面的信息,为每个患者制定最精准的预防和治疗方案。
具体来说,整合主要包括四个层面:
基因组学:评估遗传易感性
每个人的遗传背景不同,对代谢综合征的易感性和药物反应也存在差异。通过基因组学检测,可以了解个体携带的易感位点、患病风险以及对特定药物的反应,为精准干预提供基础。
微生物组学:分析肠道菌群特征
肠道菌群是代谢综合征干预的重要对象。通过分析肠道菌群组成与功能基因,可识别有益菌减少、有害菌增加或功能异常的情况。结合这些信息,可以制定个性化干预方案,包括膳食、益生菌/益生元以及生活方式调整。
代谢组学:反映代谢状态
代谢组学通过检测血液、粪便等样本的代谢谱,如血脂、血糖、TMAO、胆汁酸和短链脂肪酸水平,直观反映个体代谢状态,同时也可评估肠道菌群功能。与宏基因组学结合,可以更全面地了解代谢综合征的发病机制和个体差异。
生活方式组学:定制可执行方案
每个人的饮食、运动、睡眠和压力水平不同。生活方式组学通过收集这些数据,将干预措施与个人习惯匹配,从而制定切实可行、易于长期坚持的方案,提升干预效果。
多组学整合的价值
通过整合基因组学、微生物组学、代谢组学和生活方式组学的数据,可以对代谢综合征风险进行精准评估,制定最适合个体的干预策略,实现精准预防和个性化治疗。这将是未来代谢综合征管理的发展方向。
代谢综合征伴血脂异常的发生与发展,不仅涉及传统的血脂、血糖和体重因素,更深层次地与肠道微生物群调控的胆汁酸代谢、炎症状态及代谢信号传递密切相关。本文梳理了肠道微生物群通过多个不同的机制影响宿主的脂质代谢:
这五个机制共同作用,最终影响血脂水平,促进血脂异常的发生发展。
从临床应用的角度来看,肠道菌群检测能够帮助我们进行风险分层和早期预警,制定个性化的干预方案,预测治疗反应,评估并发症风险。这些应用正在逐渐从研究走向临床,未来肠道菌群检测很可能会成为代谢综合征患者常规评估的一部分。
尽管当前仍存在科学问题和技术挑战,如微生物-宿主交互作用、长期干预安全性及微生物组-药物相互作用,但随着多组学整合和大规模临床研究的推进,这一领域有望实现从基础研究到临床实践的快速转化。
未来需要更大规模的前瞻性队列研究,来进一步明确肠道菌群改变和代谢综合征发生发展的因果关系,还需要设计严谨的大规模临床试验,来验证各种肠道菌群干预方法的长期有效性和安全性。
但是无论如何,这个领域的发展方向是非常明确的,随着研究的不断深入,我们对肠道微生物组在代谢综合征中作用的理解会越来越深入,干预方法也会越来越成熟。
未来已来,对于代谢综合征高风险人群,以及已经患有代谢综合征的患者而言,肠道微生物组有望成为代谢综合征管理的重要抓手,了解自己的肠道菌群特征,不仅仅是了解当下的健康状态,更是把握未来健康主动权的重要一步。
希望更多的人能够了解肠道微生物组与代谢健康的关系,重视肠道健康,通过健康的饮食和生活方式,维护良好的肠道菌群平衡,远离代谢综合征,远离心血管疾病和糖尿病,享受健康美好的生活。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献:
Mohammadi F, Rudkowska I. Dietary Lipids, Gut Microbiota, and Their Metabolites: Insights from Recent Studies. Nutrients. 2025 Feb 11;17(4):639.
Ko CW, Qu J, Black DD, Tso P. Regulation of intestinal lipid metabolism: current concepts and relevance to disease. Nat Rev Gastroenterol Hepatol. 2020 Mar;17(3):169-183.
Gildner TE. Links between metabolic syndrome and the microbiome. Evol Med Public Health. 2020 Feb 19;2020(1):45-46.
Singh A, Verma A, Ashraf S, Sarfraz Sheikh D, Irfan H, Riaz R, Venjhraj F, Meghwar S, Kumar R, Tariq MD, Hamza HM, Ahsan A, Satapathy P. Role of gut microbiota in the pathogenesis of metabolic syndrome: an updated comprehensive review from mechanisms to clinical implications. Ann Med Surg (Lond). 2025 Jul 29;87(9):5851-5861.
Gut Microbiome and Metabolic Syndrome: How Dyslipidemia Is Influenced. innerbuddies
Zeng L, Yu B, Zeng P, Duoji Z, Zuo H, Lian J, Yang T, Dai Y, Feng Y, Yu P, Yang J, Yang S, Dou Q. Mediation effect and metabolic pathways of gut microbiota in the associations between lifestyles and dyslipidemia. NPJ Biofilms Microbiomes. 2025 May 28;11(1):90. doi: 10.1038/s41522-025-00721-x.
Yin J, Zhang M, Jiang W, Huang X, Yin Y. Microbial Interactions with Intestinal Lipid Digestion and Absorption: Emerging Targets for Metabolic Disorders. Research (Wash D C). 2025 Sep 19;8:0904.
Schoeler M, Caesar R. Dietary lipids, gut microbiota and lipid metabolism. Rev Endocr Metab Disord. 2019 Dec;20(4):461-472.
谷禾健康
你是否想过,一颗普通的红洋葱、一个清脆的苹果,或者一杯温热的绿茶中,究竟藏着怎样的健康密码?答案指向一种被科学家反复研究的天然活性成分——槲皮素。
作为黄酮类化合物家族中分布最广、含量最丰富的成员之一,槲皮素是植物用来抵御紫外线、病菌和氧化损伤的”保护伞”,而当人类将其摄入体内后,它同样展现出令人惊讶的生物学活性。
大量研究表明,槲皮素的核心能力在于抗氧化与抗炎,并由此延伸出多方面的健康益处:它能中和自由基、激活细胞自身的抗氧化系统,守护心血管的通畅与弹性;它能穿越血脑屏障,为神经元撑起保护伞,延缓大脑衰老;它还能调节免疫反应、缓解过敏与哮喘;并在抗肿瘤和改善代谢紊乱方面展现出令人期待的潜力。可以说,槲皮素是一位”多面手”,在心血管、神经、免疫、代谢等多个系统中发挥着保护作用。
然而,槲皮素并非”吃多少就能用多少”。它的口服生物利用度极低,水溶性差、首过代谢广泛,真正进入血液循环的原形槲皮素微乎其微。那么,是什么在决定槲皮素能否真正发挥作用?
答案藏在我们的肠道里。肠道菌群是槲皮素从”吃进去”到”用得上”的关键枢纽——它们分泌的糖苷水解酶将大分子、难吸收的槲皮素糖苷”拆解”为小分子、易吸收的活性苷元和酚酸代谢物,如二羟苯乙酸(DOPAC)等。没有这些微生物的”加工”,大量槲皮素只能作为无效成分随粪便排出。正因如此,个体间肠道菌群组成的差异,导致了槲皮素效果的”天壤之别”。
接下来,本文将带你全面了解槲皮素的健康益处、食物来源、肠道菌群的深层影响,以及如何才能更科学有效地补充槲皮素?让你摄入的每一口槲皮素都发挥出最大的价值。
槲皮素是什么?
槲皮素(Quercetin),又名栎精或槲皮黄素,是一种广泛存在于植物性食物中的天然化合物,属于黄酮类化合物大家族中的黄酮醇子类(这一类还包括山奈酚、杨梅素等),是人类膳食中重要的功能性植物成分之一。
注:槲皮素是植物界分布最广、最常见的黄酮醇类化合物。
槲皮素本身不提供能量,而是一种植物化学物质(植物次生代谢产物)。植物用它来对抗紫外线、病菌和氧化损伤。简单来说,它像是植物的“保护伞”,同时也赋予了果蔬鲜艳的颜色。
当人摄入后,它会在体内发挥多种生物学作用,因此被认为是一种具有潜在健康价值的天然活性成分。
✔ 槲皮素—分子结构
从化学结构上看,槲皮素具有典型的三环“黄酮骨架”(A、B两个芳香环与中间C环相连),并带有多个羟基(-OH),这些基团赋予其清除自由基的活性。
在自然界中,槲皮素多以与糖结合的糖苷形式存在(如槲皮素-3-O-葡萄糖苷),而去糖后的苷元才是纯槲皮素。糖苷形式水溶性更好、便于植物储存,苷元则更易穿透细胞膜但水溶性较差。
槲皮素的作用主要来自两大核心能力:抗氧化和调节炎症反应,并由此延伸至多个健康领域。下面我们整理了文献中较一致的结论,不过要注意:多数属于实验或临床前研究,具体效果强弱因人而异。
槲皮素的潜在应用
编辑
doi: 10.3390/ph16071020.
1
抗氧化作用(最基础、最重要)
我们的身体每天都会产生“自由基”——它们是代谢的副产物,但过多时会破坏细胞里的DNA、蛋白质和脂肪,导致“氧化应激”(和衰老、慢性病密切相关)。
✔ 中和自由基,减少氧化损伤
槲皮素的羟基能直接“中和”自由基(比如超氧阴离子O₂⁻、一氧化氮NO),还能激活身体自身的“抗氧化系统”:通过Nrf2-ARE信号通路(相当于细胞的“抗氧化开关”),让细胞产生更多“内源性抗氧化剂”(比如超氧化物歧化酶SOD、谷胱甘肽),从根源减少氧化损伤。
槲皮素的抗氧化、抗炎作用
编辑
doi.org/10.1002/fft2.50
此外,它还能“螯合”多余的铁离子——铁过量会引发自由基爆发,槲皮素能把铁“绑住”,避免细胞被“氧化灼伤”。
2
抗炎作用(几乎所有慢病的核心)
慢性炎症是很多疾病的根源之一,而槲皮素可以:
•抑制炎症通路:NF-κB、NLRP3炎症小体;
•降低炎症因子(如TNF-α、IL-6);
•调节免疫反应。
通俗理解,槲皮素可以把身体里“长期低烧的炎症状态”降下来。
槲皮素的抗炎信号通路
编辑
doi: 10.3390/ph16071020.
✔ 健康意义
槲皮素的这一特性对多种疾病可能具有潜在的辅助改善作用:
•例如慢性炎症性疾病等长期炎症相关问题;
•以及与代谢紊乱相关的代谢综合征;
•还包括涉及中枢或外周神经系统炎症反应的神经炎症等情况。
3
守护心血管,降低“血管硬化”风险
心血管疾病的关键诱因是血管内皮损伤(内皮是血管内壁的“保护膜”)和低密度脂蛋白(LDL)胆固醇氧化(氧化的LDL会钻进血管壁形成斑块)。
槲皮素的作用包括:
✔ 促进血管舒张:通过增加“一氧化氮(NO)”的释放,让血管平滑肌放松,降低血压(尤其是高血压或前期高血压患者,每天500mg以上剂量效果更明显)。
✔ 调节血脂:激活肝脏里的“胆固醇7α-羟化酶”(把胆固醇转化为胆汁酸排出),还能促进“反向胆固醇转运”(把血管壁的胆固醇运回肝脏代谢)。
✔ 抗血栓:抑制血小板聚集,减少血管堵塞的风险。
通俗理解:可以把槲皮素看作帮助血管维持“通畅、柔软且更有弹性”,从而降低发生堵塞的风险,让血液在血管中流动更加顺畅稳定。
4
保护神经,延缓大脑衰老
阿尔茨海默病、帕金森病等疾病的核心是神经元死亡(和氧化应激、淀粉样蛋白沉积有关)。槲皮素能穿过“血脑屏障”(很多药物进不去的大脑保护膜),通过:
✔ 抗氧化:减少多巴胺代谢产生的自由基(帕金森病患者脑内多巴胺能神经元易受损)。
✔ 抗淀粉样蛋白:阻止β-淀粉样蛋白(Aβ)聚集形成“老年斑”(阿尔茨海默病的典型病理特征)。
✔ 调节神经信号:激活MAPK/PI3K-Akt通路,保护神经元的结构和功能,改善记忆障碍。
编辑
doi: 10.3390/ijms24076328.
因此,槲皮素可能在一定程度上改善认知功能表现,并可能对延缓神经退行性疾病的发展过程产生帮助,如阿尔茨海默病、帕金森等相关疾病。
5
抗肿瘤潜力(研究较多)
癌症的本质是“细胞失控增殖”,而槲皮素能“精准打击”癌细胞,主要通过以下手段。
槲皮素对癌症主要信号通路的影响
编辑
doi: 10.3390/molecules29051000.
✔ 诱导凋亡:激活“半胱天冬酶(Caspase-3/9)”,让癌细胞“主动自杀”。
✔ 阻断增殖信号:抑制PI3K/AKT通路(癌细胞的“生长油门”),阻止它们无限分裂。
✔ 抗转移:减少“基质金属蛋白酶(MMP)”的分泌,不让癌细胞突破“围墙”转移到其他器官。
✔ 表观遗传调控:通过影响基因表达(比如关闭致癌基因、开启抑癌基因),抑制肿瘤的发生发展。
文献提到,槲皮素对乳腺癌(MCF-7细胞)、前列腺癌(LNCaP细胞)、胃癌(AGS细胞)等多种癌细胞都有抑制作用,甚至能和化疗药物(如SN-38)联用,增强药效并减少副作用。
但必须强调:目前主要是实验和辅助研究,还不能替代癌症正规治疗。
6
缓解过敏与哮喘,减轻呼吸道炎症
哮喘和过敏的核心是免疫系统过度反应:肥大细胞会释放组胺、白三烯等“炎症介质”,导致气道肿胀、黏液增多、呼吸困难。
✔ 槲皮素抑制组胺释放,调节Th1/Th2平衡
槲皮素能“按住”肥大细胞的“兴奋度”——抑制它们释放组胺;还能调节Th1/Th2平衡(免疫系统的两种“作战模式”,过敏时Th2过强),减少炎症因子(比如TNF-α、IL-6)的产生。
动物实验显示,给哮喘模型大鼠喂槲皮素糖苷,能显著降低气道里的炎症细胞(如嗜酸性粒细胞)数量,减轻支气管的高反应性(比如遇到刺激就喘)。
7
调节代谢(肥胖、糖尿病)
肥胖是“能量过剩+慢性炎症”的结果——脂肪细胞会分泌炎症因子(如TNF-α),加重代谢紊乱。槲皮素能:
✔ 抑制“脂肪生成”:下调脂肪酸合成酶(FAS)、乙酰辅酶A羧化酶(ACC)的基因表达,减少脂肪细胞的“变胖”。
✔ 促进“脂肪分解”:增加脂肪细胞里的“脂解作用”,把储存的脂肪变成能量消耗。
✔ 调节“脂肪因子”:减少炎症因子(如TNF-α),增加“脂联素”(帮助提高胰岛素敏感性的好因子)。
✔ 激活“产热通路”:通过AMPK/PPARγ通路上调“解偶联蛋白UCP1”,让白色脂肪(储能型)变成棕色脂肪(产热型),多燃烧热量。
2型糖尿病的核心是“胰岛素抵抗”(细胞对胰岛素不敏感)和“胰岛β细胞受损”。槲皮素能通过多种途径帮血糖“归位”:
✔ 激活AMPK通路(细胞的“能量传感器”):促进肌肉细胞里的“葡萄糖转运蛋白GLUT4”跑到细胞膜上,把血液里的葡萄糖“搬”进细胞(类似二甲双胍的作用)。
✔ 保护胰岛β细胞:减少氧化应激对β细胞的损伤,促进细胞再生。
✔ 抑制“醛糖还原酶”:糖尿病患者体内葡萄糖会转化为“山梨醇”堆积在眼睛里引发白内障,槲皮素能阻断这个反应。
✔ 改善“晚期糖基化终产物(AGEs)”:减少它们对血管、神经的损伤(比如糖尿病神经病变的麻木疼痛)。
槲皮素的药理疗效
编辑
doi: 10.3390/ph16111631.
小结:槲皮素的“天然优势”
槲皮素不是“神药”,但作为植物中的“天然防御物质”,通过多靶点、多通路的方式,帮身体应对氧化、炎症、代谢紊乱等问题,在多个系统(心血管、神经、代谢、免疫等)中发挥保护作用,因此被认为具有预防慢性疾病的潜力。
并且食物中的槲皮素(比如吃红洋葱、苹果)比补充剂更安全——因为食物里的糖苷形式吸收更高效,且和其他营养成分(如维生素C、膳食纤维)协同作用。
简单来说,槲皮素是“吃出来的健康帮手”——多吃富含它的果蔬,就是在给身体的“抗氧化盾牌”和“炎症刹车”助力。
槲皮素广泛存在于多种植物性食物中,主要来源可以按类别系统整理如下:
槲皮素的主要来源
编辑
doi.org/10.1007/s43450-022-00347-6
1
蔬菜类(含量较高、最主要来源之一)
•洋葱(尤其是红洋葱、紫洋葱,含量最高之一);
•西兰花;
•芦笋;
•菠菜;
•羽衣甘蓝;
•菊苣;
•生菜(深色叶菜更高);
•辣椒(尤其是青椒);
•西红柿(含量中等)。
2
水果类
•沙棘、山楂(含量较高);
•苹果(尤其是果皮中含量较高);
•浆果类:蓝莓、蔓越莓、黑莓;
•葡萄(特别是红葡萄);
•樱桃;
•芒果、李子、葡萄柚;
•柑橘类水果(含量相对较低但普遍存在)。
3
饮品类
•茶(尤其是绿茶、红茶);
•咖啡;
•葡萄汁、柠檬汁、番茄汁;
•红酒(来源于葡萄皮中的槲皮素)。
4
谷物与种子类
•荞麦(非常重要来源,含量较高);
•全谷物(如燕麦等,含量相对较低但稳定)。
5
草本与其他植物来源
•其他洋葱属植物(如大葱、韭菜);
•香菜;
•莳萝;
•其他食用植物叶片和外皮部分(通常富集更多)。
•另外,约有100多种药用植物(如槐米、侧柏叶、高良姜、款冬花、桑寄生、三七、银杏、接骨木等)中均含有此成分。
!
补充说明
总体来看,槲皮素主要来自日常的蔬菜、水果和饮品,是一种典型的“广泛存在但分布不均”的植物活性成分。
补充槲皮素并非简单地“吃进去多少,就能利用多少”,其最终能否被有效吸收并发挥作用,还会受到多种因素的共同影响和限制。
▸ 槲皮素在人体内的吸收与利用
槲皮素在自然界中主要以糖苷形式(如槲皮素-3-O-葡萄糖苷、芦丁等)存在,其吸收过程与葡萄糖苷键密切相关。
这一点非常关键,因为:
•不同糖基 → 决定吸收路径不同;
•生物利用度差异很大。
⑴ 释放与水解(胃肠道阶段)
膳食来源:富含槲皮素的食物如洋葱、苹果等,在胃酸环境下,部分糖苷可能开始解离。
在小肠中发生两条主要路径:
①路径A:刷状缘酶水解(最重要)
酶:乳糖苷酶/β-葡萄糖苷酶(LPH等)
过程:
槲皮素糖苷 → 去糖基 → 变为“游离槲皮素”,
随后通过被动扩散进入肠上皮细胞。
②路径B:转运体介导吸收
典型转运蛋白:
SGLT1(钠依赖葡萄糖转运蛋白)
OATP(有机阴离子转运体)
某些糖苷(如槲皮素-葡萄糖苷)可直接被转运进入细胞
重点:是否带“合适糖基”,直接影响吸收效率
结肠吸收(菌群依赖途径):多糖苷(如芦丁)和未被小肠吸收的糖苷进入结肠,依赖肠道菌群分泌的糖苷水解酶将其转化为苷元(后文将重点分析肠道菌群对槲皮素的影响)。
槲皮素在肠道中的吸收、代谢和运输
编辑
doi.org/10.1002/fft2.50
⑵ 肠上皮内“首过代谢”
刚被吸收后,槲皮素几乎不会以“原形”进入血液,而是迅速被转化:
主要代谢反应:
生成:
进入血液循环的主要是“结合型代谢物”,而非原型槲皮素。
⑶ 肝脏进一步代谢(系统性转化中心)
经门静脉进入肝脏后,再次经历强化的代谢,进一步提高:
随后两条路径:
① 进入体循环 → 分布组织;
② 经胆汁 → 回肠道(肠肝循环)。
意义:
槲皮素在肝脏中吸收、代谢和运输
编辑
doi.org/10.1002/fft2.50
⑷ 分布与排泄
代谢产物进入血液循环,分布至器官:
•肝、肾(最高)
•心、肺;
•脑(可跨血脑屏障)。
槲皮素吸收、代谢和体内消除过程
编辑
doi.org/10.1002/fft2.50
最终通过尿液(约5-10%)和胆汁(大部分)排泄。胆汁排泄的代谢物可能进入肠肝循环,再次被肠道菌群水解,延长作用时间。
▸ 槲皮素吸收利用中存在的主要问题
①极低的水溶性与化学不稳定性:槲皮素苷元脂溶性高但水溶性极差,且在生理pH下易氧化降解,这直接限制了其游离形式的生物利用度。
②广泛的首过代谢:如文献中所述,即使摄入高剂量(如50g洋葱或375mL茶),血浆中几乎检测不到原形槲皮素,全是代谢产物,这降低了其直接生物活性。
③吸收的饱和性:小肠的SGLT1转运体容量有限。当摄入高剂量时,吸收率可能反而下降。
④个体差异巨大:不同个体的肠道菌群组成、代谢酶活性(如COMT)差异导致对同一食物来源的槲皮素响应千差万别。
编辑
▸ 肠道菌群如何影响槲皮素的吸收利用?
肠道菌群对槲皮素的吸收利用并非简单的“辅助”,而是决定其最终生物活性的“重要开关”。这个过程本质上是菌群将大分子、难吸收的槲皮素糖苷“拆解”成小分子、易吸收且具有新活性的代谢产物的过程。
槲皮素在食物中大多以糖苷形式(如芦丁、异槲皮苷)存在。这些糖苷分子量大、极性高,无法直接通过小肠上皮细胞被动扩散吸收。如果肠道菌群缺失,这些物质将作为“无效成分”随粪便排出。菌群的作用就是通过酶切和裂解,将其转化为苷元和酚酸,使其具备跨膜吸收能力。
①第一步:去糖基化(活化)
这是吸收的前提。菌群分泌的糖苷水解酶切掉槲皮素分子上的糖链(如葡萄糖、鼠李糖),释放出活性苷元。
关键菌群包括以下几类:
•拟杆菌属(Bacteroides):如 B.uniformis, B.ovatus,擅长产生广谱糖苷酶。
•乳杆菌属(Lactobacillus)与双歧杆菌属(Bifidobacterium):部分菌株可产生β-葡萄糖苷酶/鼠李糖苷酶。
•大肠杆菌(E.coli)与肠球菌(Enterococcus):部分菌株也具备此功能。
具体作用:将芦丁→ 槲皮素-3-葡萄糖苷 → 槲皮素苷元。
如何影响吸收:苷元的脂溶性远高于糖苷,更易通过被动扩散或转运体进入肠上皮细胞。没有这一步,后续吸收无从谈起。
②第二步:C环裂解(降解)
苷元在结肠深处被特定菌群“拆解”骨架,这是生物利用度差异的最大来源。
关键菌群主要是专性厌氧菌:
•真杆菌属(Eubacterium):尤其是 E. ramulus(细枝真杆菌),这是人类肠道中最主要的槲皮素降解菌之一。它能将槲皮素C环裂解,生成3,4-二羟基苯乙酸(DOPAC)。
•梭菌属(Clostridium):如 C. orbiscindens, C.perfringens(产气荚膜梭菌)。它们能执行类似的裂解反应,生成DOPAC或3-(3,4-二羟基苯基)丙酸等。
•黄酮降解菌(Flavonifractor plautii):专门负责黄酮类化合物的C环裂解。
具体作用:槲皮素苷元 → 查耳酮中间体 → 酚酸(如DOPAC)。
如何影响吸收:苷元虽然能被吸收,但极易被肝脏代谢(首过效应)。而DOPAC等酚酸分子量小、水溶性好,吸收效率极高,且能避开部分首过代谢,直接进入体循环发挥全身作用。
③第三步:次级修饰(再加工)
生成的初级酚酸会被其他菌群进一步修饰,改变其生物活性。
具体作用:
•脱羟基:DOPAC(3,4-二羟基)→ 3-羟基苯乙酸或4-羟基苯乙酸。
•甲基化:生成异香草酸等。
这些修饰改变了代谢物的极性和稳定性,影响了其在体内的半衰期和靶点亲和力。
✔ 菌群协作与代谢产物图谱
肠道菌群是一个生态系统,它们通过“交叉喂养”协作完成代谢。例如,Bacteroides thetaiotaomicron本身不代谢槲皮素,但它能降解淀粉为葡萄糖,为 E.ramulus提供能量,从而促进后者对槲皮素的降解。
槲皮素在肠道内的典型代谢路径与产物:
编辑
✔ 菌群差异如何导致生物利用度“天差地别”
“降解型”菌群 vs “保守型”菌群:若个体肠道内富含 E. ramulus 和 梭菌,槲皮素会被迅速降解为二羟苯乙酸(DOPAC),尿液中酚酸排泄量高,全身可利用的活性代谢物多。
若个体缺乏这些裂解菌,槲皮素可能仅被去糖基化,吸收量有限,且多以原形在肝脏被结合排出。
“菌群-底物”匹配度:摄入芦丁(芸香糖苷)等复杂糖苷,完全依赖菌群的α-鼠李糖苷酶和β-葡萄糖苷酶。缺乏相应酶的菌群(如某些人群),芦丁的生物利用度很低。
摄入洋葱(富含槲皮素-4′-葡萄糖苷),小肠可直接吸收一部分,对菌群依赖较小,故生物利用度相对稳定。
小结:菌群影响的“双刃剑”
正面(增效):菌群将“无效”糖苷转化为高生物利用度的活性酚酸,这是槲皮素发挥抗炎(激活CD8+ T细胞)、神经保护等作用的关键步骤。
负面(失活):过度降解会将槲皮素彻底分解为简单酚酸,丧失其原有的强抗氧化活性(因破坏了共轭结构)。
因此,肠道菌群不仅是槲皮素的“吸收助手”,更是其“活性转化工厂”。个体菌群结构的差异(如普雷沃菌与拟杆菌的比例)直接决定了你吃下去的洋葱或浆果,最终有多少能真正转化为进入血液的“有效槲皮素”。
▸ 槲皮素对肠道菌群的具体影响
槲皮素本质上表现为一种“类益生元调节因子”,其核心作用机制是:选择性促进有益菌生长、抑制致病菌繁殖,同时增强菌群代谢产物(如短链脂肪酸)的生成,从而改善肠屏障功能、降低炎症反应并影响全身代谢过程。
槲皮素对肠道菌群的调节作用主要体现在以下几个方面:
⑴ 促进有益菌的生长
•双歧杆菌(Bifidobacterium)↑:多项研究(包括综述和动物实验)一致发现槲皮素可显著增加双歧杆菌数量。这类菌能产生乙酸和乳酸,抑制致病菌生长,促进肠屏障功能,从而改善肠道稳态。
•乳杆菌(Lactobacillus)↑:作为多酚干预后常见的增加菌属,乳酸杆菌能降低肠道pH值,产生抗菌物质,调节免疫功能。
普拉梭菌(Faecalibacterium prausnitzii)↑:作为重要的抗炎菌和丁酸主要来源菌,普拉梭菌能抑制NF-κB炎症通路,维持上皮细胞完整性。
•罗斯氏菌(Roseburia)↑:这是一类与代谢健康密切相关的产丁酸菌,其数量增加有助于改善代谢指标。
•Akkermansia muciniphila ↑(部分研究):作为一种黏液降解菌,Akkermansia muciniphila能促进黏液层更新,与肥胖改善和糖代谢改善密切相关。
⑵ 抑制有害菌/条件致病菌
•变形菌门(Proteobacteria)↓:作为肠道菌群失衡的关键标志菌门,变形菌门包含多种致炎菌。研究显示在小鼠中,槲皮素干预可显著降低变形菌门数量。
•大肠杆菌(Escherichia coli)↓:作为典型的内毒素(LPS)来源菌,大肠杆菌数量减少与炎症减轻和肠屏障功能改善相关。
•肠杆菌科(Enterobacteriaceae)↓:这类菌与代谢紊乱密切相关,其数量减少有助于改善代谢指标。
•梭杆菌科(Fusobacteriaceae)(部分下降):与炎症反应和肿瘤发生相关,部分研究显示槲皮素可降低其数量。
⑶ 恢复菌群多样性
菌群多样性是肠道健康的重要指标。文献研究显示,抗生素破坏后肠道菌群多样性显著下降,而槲皮素干预可使α多样性显著恢复。这表明槲皮素的核心作用之一是“把失衡菌群拉回健康结构”。
⑷ 对菌群代谢产物的影响
短链脂肪酸(SCFAs)↑:槲皮素干预可显著增加短链脂肪酸的生成,尤其是丁酸盐↑(最关键)、丙酸盐↑、乙酸盐↑。
动物研究显示,槲皮素干预后粪便丁酸盐水平显著增加。丁酸盐作为肠上皮细胞的主要能量来源,具有多种重要生理功能:增加紧密连接蛋白表达、降低炎症反应、调节免疫Treg细胞等。这是“菌群→宿主”相互作用的关键桥梁。
内毒素(LPS)↓:槲皮素通过减少大肠杆菌和变形菌门等内毒素产生菌的数量,显著降低肠道内毒素(LPS)水平。其结果是:
•降低全身炎症反应
•改善胰岛素抵抗
代谢通路改变:代谢组学研究显示,在小鼠中,槲皮素干预可引起多条代谢通路的改变,这些变化与糖脂代谢改善密切相关。
⑸ 对肠道屏障功能的影响
槲皮素对肠道屏障功能的改善作用主要体现在:
•紧密连接蛋白 ↑:ZO-1、Occludin和Claudin等紧密连接蛋白表达增加;
•肠通透性 ↓:D-乳酸和二胺氧化酶等肠通透性指标显著下降;
•肠道形态改善:绒毛长度增加,黏膜厚度增加。
槲皮素调节肠道微生物组成及肠道屏障保护
编辑
doi.org/10.1002/fft2.50
结果:有效防止”肠漏”发生,减少毒素进入血液循环。
总的来说,槲皮素可以通过促进有益菌、抑制致病菌、增强短链脂肪酸生成并修复肠屏障,将肠道从“炎症型生态”转向“稳态型生态”,进而对代谢、免疫乃至全身健康产生系统性益处。
随着对槲皮素研究的不断深入,人们逐渐发现其与多种药物之间存在较为复杂且多层面的相互作用,这些相互作用可能在一定程度上影响相关药物的疗效发挥,甚至增加不良反应发生的风险。
本章节将围绕槲皮素与不同类别药物之间的相互作用,从其潜在机制入手,结合相关研究结果,对其可能产生的影响及其在临床应用中的意义进行较为全面的介绍。
▸ 槲皮素与药物相互作用的基本机制
槲皮素与药物的相互作用主要通过以下三个途径实现:
⑴ 影响药物代谢酶系统(CYP450酶系)
槲皮素可抑制肝脏和肠道中的细胞色素P450(CYP450)酶系统,尤其是CYP3A4和CYP2C19。这些酶负责许多药物的代谢清除,当它们的活性被抑制时,药物在体内的代谢减慢,导致血药浓度升高,可能增强药效或增加毒性风险。
编辑
⑵ 干扰药物转运蛋白功能
槲皮素可抑制多种药物转运蛋白,包括:
OATP(有机阴离子转运蛋白):如OATP1B1、OATP1B3,主要负责药物从血液进入肝细胞的摄取过程。
P-gp(P-糖蛋白):主要在肠道、肾脏和血脑屏障中表达,负责将药物从细胞内泵出。
BCRP(乳腺癌耐药蛋白):参与多种抗癌药物的外排过程。
MRP2(多药耐药相关蛋白2):参与药物及其代谢物的排泄。
这些转运蛋白被抑制后,会改变药物的吸收、分布和排泄过程,导致血药浓度异常变化。
⑶ 药效学协同或拮抗作用
槲皮素本身具有抗氧化、抗炎、降糖等生物活性,与具有相似或相反作用的药物联用时,可能产生协同或拮抗效应,增强或减弱药物疗效。
简单来说,槲皮素通过“抑制代谢+改变转运+协同药效”这三种方式,影响药物在体内的吸收、分布、代谢和排泄,从而改变药物的血药浓度(AUC)和最终疗效/毒性。
1
槲皮素与抗癌药物的相互作用
槲皮素与抗癌药物的相互作用具有“双刃剑”特性,既可能增强疗效,也可能增加毒性风险。
✔ 作用机制总结:
槲皮素通过以下途径影响抗癌药物效果:
•抑制P-gp和BCRP表达,逆转肿瘤细胞的多药耐药性。
•增加caspase-3活性和Bax/Bcl-2比值,促进肿瘤细胞凋亡。
•减少ROS相关损伤,发挥抗氧化保护作用。
•抑制NF-κB通路,增强抗炎和抗肿瘤效果。
槲皮素与抗肿瘤药物用于治疗癌症
编辑
doi.org/10.1007/s43450-022-00347-6
2
槲皮素与降糖药物的相互作用
槲皮素本身具有一定的降糖活性,与降糖药物联用时可能产生协同效应,增强降糖效果,但有时也会增加低血糖风险。
编辑
✔ 临床意义:糖尿病患者在服用降糖药物期间,若同时使用槲皮素补充剂,应密切监测血糖变化,警惕低血糖发生,必要时调整药物剂量。
3
槲皮素与抗生素的相互作用
槲皮素与抗生素的相互作用较为复杂,可能增强或减弱药效,或影响药物代谢。
编辑
特别提示:槲皮素还可通过改变肠道菌群组成影响口服抗生素的代谢和吸收,可能导致药效不稳定。
4
槲皮素与心血管药物的相互作用
槲皮素与多种心血管药物存在显著相互作用:
编辑
!极高风险组合:地高辛与槲皮素的相互作用已在动物实验中证实可导致猝死,临床应避免合用。
5
槲皮素与降脂药物(他汀类)的相互作用
他汀类药物是CYP3A4和OATP的底物,易受槲皮素影响。
编辑
✔ 临床建议:服用他汀类药物的患者,若同时使用槲皮素补充剂,应密切监测肌痛、乏力等症状,定期检查肌酸激酶(CK)水平,警惕肌病和横纹肌溶解症的发生。
6
槲皮素与精神药物的相互作用
编辑
7
槲皮素与凝血药物的相互作用
槲皮素具有抑制血小板聚集和抗凝血作用,与抗凝药物联用时可能增加出血风险。
编辑
!特别警告:华法林与槲皮素的相互作用具有高度风险,可能导致严重出血事件,临床上应避免将高剂量槲皮素与华法林联用。
▸ 槲皮素药物相互作用的特点与风险因素
⑴ 剂量依赖性
槲皮素和药物相互作用具有明显的剂量依赖性:
膳食摄入(低剂量):日常饮食中摄入的槲皮素(如每天食用洋葱、苹果等)剂量较低(通常为数毫克至数十毫克),一般不会产生显著的药物相互作用。
补充剂(高剂量):当槲皮素以补充剂形式高剂量摄入时(通常为500mg/天以上),药物相互作用风险显著增加,可能产生临床意义的影响。
⑵ 个体差异大
不同个体对槲皮素与药物相互作用的反应存在显著差异,主要影响因素包括:
肠道菌群组成:肠道菌群可代谢槲皮素,不同菌群结构可能导致槲皮素代谢产物和暴露量的差异。
基因多态性:CYP450酶系(如CYP3A4、CYP2C19)和转运蛋白的基因多态性可影响其活性,导致药物代谢和转运的个体差异。
基础疾病状态:肝肾功能不全可能影响槲皮素和药物的代谢排泄,增加相互作用风险。
⑶ “体外强,体内不一定强”
许多槲皮素的药物相互作用在体外实验中显示显著效果,但在人体研究中可能观察不到同等程度的影响。这是因为:
•槲皮素在体内会被快速代谢,生物利用度较低;
•体外实验中槲皮素浓度通常高于体内可达到的实际浓度;
•肠道首过效应和组织分布特性可能减弱其体内作用。
因此,不能单纯根据体外研究结果推断槲皮素在人体内的药物相互作用强度。
小编的话
槲皮素是一种具有多种生物活性的天然黄酮类化合物,通过抑制CYP450代谢酶、干扰转运蛋白功能和产生药效学协同/拮抗作用,可与多种药物发生相互作用。这些相互作用在高剂量补充剂使用时尤为显著,可能影响药物疗效或增加不良反应风险,尤其是与地高辛、华法林、降糖药和抗癌药等联用时需特别谨慎。
对于大多数健康人群,通过日常饮食适量摄入槲皮素是安全的,无需过度担忧。但对于需要长期服用药物的慢性病患者,特别是服用上述高风险药物的人群,应避免自行使用槲皮素补充剂,必要时在医生指导下使用,并进行密切监测,以确保用药安全有效。
槲皮素作为一种广泛存在于天然食物中的多酚类活性成分,其摄入方式与体内利用效率近年来逐渐受到关注。尽管槲皮素具有多种潜在健康益处,但其实际生物效应在很大程度上受到吸收效率、生物利用度及个体差异的限制。
基于此,有必要对槲皮素的合理摄入途径、补充剂使用时机以及提高其利用率的关键因素进行系统梳理,以更科学地指导其在营养与健康管理中的应用。
吃进去≠被身体用上
在讨论”怎么补”之前,我们必须面对一个重要的科学事实——槲皮素的口服生物利用度极低。
原因包括:
所以,补充槲皮素的核心逻辑从来不是”吃多少”,而是”吃对形式 + 吃得更容易被吸收 + 让肠道菌群帮你加工“。接下来的内容都围绕这个逻辑展开。
1
从天然食物获取:最安全、最推荐的基础方式
✔ 哪些食物富含槲皮素?
槲皮素广泛存在于植物性食物中,但含量差异巨大。以下数据来自数据库及文献汇总:
槲皮素的主要来源
编辑
doi: 10.3390/ph16071020.
编辑
几个值得记住的要点:
✔ 怎么吃才能留住更多槲皮素?
知道吃什么只是第一步,怎么吃同样关键——甚至更关键。
第一,少加工、少去皮: 槲皮素集中在植物表皮和外层组织中。苹果带皮吃、洋葱只去最外层干皮,是最简单的保量策略。煮沸会显著降低槲皮素含量,储存12天的洋葱会损失约33%。因此,优先选择生食,若需烹调,应以快炒或短时蒸煮为宜。
第二,搭配一点脂肪:槲皮素虽非典型脂溶性物质,但具有较强脂溶性,与膳食脂肪同服可使其生物利用度提高约2倍。实际应用中无需精确控制脂肪摄入,简单搭配如橄榄油拌洋葱、西兰花配坚果或苹果蘸花生酱即可。
第三,长期规律摄入远比一次猛吃重要: 口服槲皮素糖苷后,消除半衰期约为11–28小时,这意味着它不会在体内长期蓄积。一次性大量摄入后其水平会迅速回落,而每日少量、持续补充更有助于维持稳定血药浓度,从而发挥抗炎和抗氧化作用。
✔ 天然食物的隐性优势
为什么始终推荐以食物为基础?不只是因为”天然”这个标签,而是有实实在在的科学理由:
简而言之,日常保健和轻度抗炎需求,食物完全够用。
2
补充剂:什么时候才真正有意义?
✔ 谁需要考虑补充剂?
如果你的情况属于以下任何一种,单纯靠食物可能不够:
✔ 补充剂的最大痛点:吸收差
普通槲皮素苷元补充剂面临和食物一样的问题——甚至更严重,因为食物中的糖苷形式反而比苷元更容易吸收。
好在,科学的进步已经提供了一些解决方案:
①先进制剂
编辑
②改变化学形式:槲皮素寡糖苷比苷元吸收率高约 20 倍,比芦丁高 10 倍,比单糖苷高 2 倍。这实际上更接近天然食物中槲皮素的存在形式。
③简单搭配策略:
✔ 安全上限
推荐每日最大剂量为1200mg。1000 mg/天持续 12 周的临床试验未观察到显著副作用,但超过12周的长期安全性数据目前仍然缺乏。
高剂量(>1 g/天)可能引起头痛、胃肠不适、四肢刺痛感,长期大剂量还可能增加肾结石风险(与草酸盐代谢物有关)。此外,槲皮素可抑制甲状腺过氧化物酶和 5′-脱碘酶 I 型,甲状腺功能异常者需格外谨慎。
3
被严重低估的关键变量:肠道菌群
未被小肠吸收的槲皮素进入结肠后,需要特定肠道细菌将其”拆解”为更小的活性分子。目前已鉴定出多个关键菌种:
这些细菌产生的代谢产物——二羟苯乙酸(DOPAC)、原儿茶酸、3-(3,4-二羟基苯基)丙酸等——是槲皮素在体内发挥许多生物学效应的重要”功臣”。
✔ 菌群代谢物增强抗肿瘤免疫
2025 年发表在 Cell Metabolism 上的研究揭示了一个令人振奋的机制:槲皮素被肠道菌群代谢产生的 二羟苯乙酸(DOPAC),可通过激活 KEAP1-NRF2 通路增强 CD8⁺ T 细胞的抗肿瘤免疫功能,并与免疫检查点阻断疗法产生协同效应。
这意味着,槲皮素的抗癌潜力可能高度依赖于你的肠道菌群能否将它转化为 DOPAC。
✔ 个体差异较大
由于每个人的肠道菌群组成不同,对槲皮素的代谢能力存在巨大差异。抗生素破坏菌群后,槲皮素的生物活性显著降低。这解释了一个常见困惑:为什么有人吃了槲皮素觉得效果明显,有人却毫无感觉——不是槲皮素没用,而是你的菌群”加工厂”产能不同。
✔ 怎么优化?养好你的菌群
好消息是,槲皮素与肠道菌群的关系是双向的:槲皮素也能反过来调节菌群组成——降低厚壁菌门/拟杆菌门比值,增加 Akkermansia、双歧杆菌和乳杆菌等有益菌。但要启动这个正向循环,你需要同时做好两件事:
一句话总结:养菌群就是养槲皮素的效果。
✔ 黄金搭配:让槲皮素发挥更大效用
槲皮素 + 维生素C:这是最经典、证据最充分的组合。维生素C不仅能与槲皮素产生协同抗氧化效应,还能稳定槲皮素分子、减缓其氧化降解。
槲皮素 + 多酚:天然食物中,槲皮素从不孤军奋战。白藜芦醇、儿茶素(绿茶)、花青素(浆果)等多酚类与槲皮素存在协同抗炎效应。与其追求单一成分的高剂量,不如通过多样化的植物性饮食构建一个”多酚朋友圈”。
槲皮素 + 膳食脂肪:搭配脂肪可提升约2倍生物利用度。不需要大量油脂,一小勺橄榄油或几颗坚果即可。
一句话总结
槲皮素不是”吃得越多越好”的简单营养素,而是一个依赖吸收效率和肠道菌群加工的功能性成分。
最优策略是:以天然食物为根基,用科学搭配提升吸收,在特定需求下谨慎选择高生物利用度补充剂——同时,永远别忘了照顾好你肠道里那些默默帮你”加工”槲皮素的小小细菌。
来自蔬菜水果中的槲皮素作为一种天然多酚类活性成分,在抗氧化、抗炎、心血管保护、神经保护、抗肿瘤及代谢调节等领域展现出了广泛的潜在益处。
肠道菌群对槲皮素而言是一个精密的活性转化工厂。与此同时,槲皮素也能反过来调节菌群组成,促进有益菌增殖、抑制致病菌、增加短链脂肪酸生成并修复肠屏障,形成一个双向互促的循环。
个体菌群特征可以预判个体对槲皮素的代谢能力,例如关键降解菌(如E. ramulus、Flavonifractor plautii等)的丰度,从而实现”因人制宜”的个性化推荐。
未来槲皮素菌群代谢产物的药理活性值得更深入的研究,尤其是在抗肿瘤免疫、神经保护等方面的具体机制和临床转化潜力。此外,如何通过益生元、益生菌或菌群移植等手段定向优化肠道菌群,以提升槲皮素的生物利用度,值得持续关注和探索。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Mirza MA, Mahmood S, Hilles AR, Ali A, Khan MZ, Zaidi SAA, Iqbal Z, Ge Y. Quercetin as a Therapeutic Product: Evaluation of Its Pharmacological Action and Clinical Applications-A Review. Pharmaceuticals (Basel). 2023 Nov 20;16(11):1631.
Yang D, Wang T, Long M, Li P. Quercetin: Its Main Pharmacological Activity and Potential Application in Clinical Medicine. Oxid Med Cell Longev. 2020 Dec 30;2020:8825387.
Carrillo-Martinez EJ, Flores-Hernández FY, Salazar-Montes AM, Nario-Chaidez HF, Hernández-Ortega LD. Quercetin, a Flavonoid with Great Pharmacological Capacity. Molecules. 2024 Feb 25;29(5):1000.
Aghababaei F, Hadidi M. Recent Advances in Potential Health Benefits of Quercetin. Pharmaceuticals (Basel). 2023 Jul 18;16(7):1020.
Zou H, Ye H, Kamaraj R, Zhang T, Zhang J, Pavek P. A review on pharmacological activities and synergistic effect of quercetin with small molecule agents. Phytomedicine. 2021 Nov;92:153736.
Batiha GE, Beshbishy AM, Ikram M, Mulla ZS, El-Hack MEA, Taha AE, Algammal AM, Elewa YHA. The Pharmacological Activity, Biochemical Properties, and Pharmacokinetics of the Major Natural Polyphenolic Flavonoid: Quercetin. Foods. 2020 Mar 23;9(3):374.
Chiang MC, Tsai TY, Wang CJ. The Potential Benefits of Quercetin for Brain Health: A Review of Anti-Inflammatory and Neuroprotective Mechanisms. Int J Mol Sci. 2023 Mar 28;24(7):6328.
doi.org/10.1002/fft2.50
doi.org/10.1007/s43450-022-00347-6
Yuan M, Sun T, Zhang Y, Guo C, Wang F, Yao Z, Yu L. Quercetin Alleviates Insulin Resistance and Repairs Intestinal Barrier in db/db Mice by Modulating Gut Microbiota. Nutrients. 2024 Jun 14;16(12):1870.
Deepika, Maurya PK. Health Benefits of Quercetin in Age-Related Diseases. Molecules. 2022 Apr 13;27(8):2498.
Nie J, Zhang L, Zhao G, Du X. Quercetin reduces atherosclerotic lesions by altering the gut microbiota and reducing atherogenic lipid metabolites. J Appl Microbiol. 2019 Dec;127(6):1824-1834.
Ulusoy HG, Sanlier N. A minireview of quercetin: from its metabolism to possible mechanisms of its biological activities. Crit Rev Food Sci Nutr. 2020;60(19):3290-3303.
Almeida AF, Borge GIA, Piskula M, Tudose A, Tudoreanu L, Valentová K, Williamson G, Santos CN. Bioavailability of Quercetin in Humans with a Focus on Interindividual Variation. Compr Rev Food Sci Food Saf. 2018 May;17(3):714-731.
Shi T, Bian X, Yao Z, Wang Y, Gao W, Guo C. Quercetin improves gut dysbiosis in antibiotic-treated mice. Food Funct. 2020 Sep 23;11(9):8003-8013.
Chen X, Pan S, Li F, Xu X, Xing H. Plant-Derived Bioactive Compounds and Potential Health Benefits: Involvement of the Gut Microbiota and Its Metabolic Activity. Biomolecules. 2022 Dec 13;12(12):1871.
Oh JH, Lee JH, Lee YJ. Evaluation of the Mrp2-mediated flavonoid-drug interaction potential of quercetin in rats and in vitro models. Asian J Pharm Sci. 2019 Nov;14(6):621-630.
Mohos V, Fliszár-Nyúl E, Ungvári O, Kuffa K, Needs PW, Kroon PA, Telbisz Á, Özvegy-Laczka C, Poór M. Inhibitory Effects of Quercetin and Its Main Methyl, Sulfate, and Glucuronic Acid Conjugates on Cytochrome P450 Enzymes, and on OATP, BCRP and MRP2 Transporters. Nutrients. 2020 Jul 31;12(8):2306.
Tamura M, Hoshi C, Kobori M, Takahashi S, Tomita J, Nishimura M, Nishihira J. Quercetin metabolism by fecal microbiota from healthy elderly human subjects. PLoS One. 2017 Nov 27;12(11):e0188271.