-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
健身房里,很多人把支链氨基酸(BCAA)当作训练前后来一勺的”肌肉饮料”;但是越来越多研究结果指向BCAA是糖尿病、脂肪肝、心血管事件的代谢预警信号。
同一种物质,为什么既被当作营养补剂追捧,又被当作疾病风险标记信号?
答案可能藏在”量”与”去向”里。
支链氨基酸(BCAA)指的是亮氨酸(Leucine,Leu)、异亮氨酸(Isoleucine,Ile)和缬氨酸(Valine,Val)这三种分子结构上带有“支链”的氨基酸。它们是人体必需氨基酸必须依赖食物摄入;它们约占人体摄入并整合进蛋白质的氨基酸总量的20%左右。
适量、通畅地被肌肉氧化利用时,它们是维持肌肉、调节能量、合成神经递质的”好帮手”;而当代谢通道被堵住、血浆浓度长期升高时,它们及其下游产物可能会反过来损伤胰岛素信号、诱发炎症和脂毒性。
目前越来越多的研究发现,血液里 BCAA 高不高,除了与饮食摄入以及肌肉、肝脏和脂肪代谢有关,还与肠道及肠道菌群密切相关。一部分肠道细菌能合成BCAA,另一些细菌则参与分解、消耗它们。
当菌群失衡导致天平向”合成”一侧倾斜时,即使吃得不算多,循环 BCAA 也可能悄悄升高。理解这条”肌肉—肝脏—脂肪—肠道菌群”的完整链路,才能真正读懂BCAA 对健康意味着什么,也才谈得上“怎么吃、怎么练、怎么查”。
下面我们从最基础的概念出发,逐层拆开这套系统。
支链氨基酸(BCAA)之所以被单独拎出来讲,是因为它们身上有两个鲜明的共同点。
▸ 结构上的”支链”:一条侧链决定了一整类代谢
普通氨基酸的侧链多是直链,而亮氨酸、异亮氨酸、缬氨酸的侧链是带分支的碳链——这正是”支链氨基酸”名字的由来。
别看只是多了一个”叉”,这个分支结构让它们在体内的分解必须走一套专属的酶系统。结构的独特性,直接决定了它们代谢命运的独特性。
▸ 必需,而且”用量大”
三种支链氨基酸(BCAA)都是人体无法自行合成的必需氨基酸。在人类膳食中,总蛋白摄入的大约 20%来自 BCAA。也就是说,只要吃的是正常比例的肉、蛋、奶、豆、鱼,每天摄入的 BCAA 量通常并不小。它们进入体内后主要有三个去向:
用于蛋白质合成:成为肌肉、器官蛋白;
进入线粒体氧化供能:在能量不足时贡献碳骨架,最终进入三羧酸(TCA)循环;
作为氮供体:为大脑合成谷氨酸、γ-氨基丁酸(GABA)等神经递质,参与非必需氨基酸的合成。
▸ 三重身份:营养、信号与”生物标志”
BCAA 区别于其它氨基酸的地方,在于它同时扮演三种角色:它既是营养底物(造蛋白、供能),又是信号分子(尤其亮氨酸,是激活 mTORC1 通路的强效”开关”,能启动肌肉蛋白合成),还是一个可被血液检测捕捉的生物标志物。
近十多年来,大量人群研究把”空腹血浆 BCAA 水平升高”与肥胖、胰岛素抵抗、2 型糖尿病、非酒精性脂肪肝乃至未来心血管事件的风险联系了起来。
总之,它们既是造肌肉的原料,也是激活代谢信号的信使——用得好是燃料,堆积起来就是风险提示。
要理解 BCAA 为什么会累积、又为什么能伤身,必须先看懂它们被分解的这条流水线。
与大多数氨基酸主要在肝脏氧化不同,BCAA 的分解主要发生在肝外组织,原因很关键:肝细胞内的支链氨基酸转氨酶(BCAT)活性很低,因此肝脏并不是分解 BCAA 的主力;真正干活的是骨骼肌、脂肪组织、肾脏、胰腺、心脏等器官。
这也是为什么一次高蛋白大餐后,血液里的 BCAA 会明显、且持续地升高——它们要运输到肌肉和脂肪里才能被处理。
1. 转氨基——BCAT把BCAA变成BCKA
分解的第一步,是由支链氨基酸转氨酶(BCAT)催化的可逆反应:BCAA 被转去氨基,变成对应的支链酮酸(Branched-Chain α-Keto Acids,BCKA)
亮氨酸→α-酮异己酸;
异亮氨酸→α-酮-β-甲基戊酸;
缬氨酸→α-酮异戊酸。
其中 BCAT2 在骨骼肌中占主导。这一步释放出来的氮,可以被用来合成谷氨酸、丙氨酸、谷氨酰胺等,参与全身的氮转运。
2. 不可逆的”开关”——BCKDH 复合物
第二步是整个分解的限速步骤,也是不可逆的”卡口”:BCKA 由支链α-酮酸脱氢酶复合物(BCKDH)氧化脱羧,生成对应的酰基辅酶 A(acyl-CoA)和 NADH。这个复合物由 E1、E2、E3 三个亚基组成,其活性受到精密的”磷酸化开关”调控:
BCKDK(支链酮酸脱氢酶激酶):把 E1α 亚基第 293 位丝氨酸(Ser293)磷酸化,使复合物失活——相当于”踩刹车”;
PPM1K(蛋白磷酸酶 1K):把同一位置去磷酸化,使复合物激活——相当于”松刹车”。
当体内 BCAA/BCKA 比例升高时,PPM1K 介导的去磷酸化增强,BCKDH 被打开、加速分解;反之,当 BCAA 不足时,BCKDK 占上风,BCKDH 被关小,节约氨基酸。这个”刹车—油门”的平衡,是决定你血浆 BCAA 高低的核心分子开关。
3. 下游去向:进入 TCA 循环,或被”改道”去合成脂肪
BCKA 脱羧后生成的 acyl-CoA 继续被加工,最终产生乙酰辅酶 A(acetyl-CoA)和琥珀酰辅酶 A(succinyl-CoA),汇入三羧酸(TCA)循环彻底氧化放能。
这条通路在能量供应上贡献可观。但请注意一个隐藏的”岔路”:乙酰辅酶 A同时也是脂肪合成(脂质从头合成,DNL)的原料。当 BCAA 分解不畅、代谢通道拥堵时,这些碳骨架就可能被”改道”用于脂肪生成——这正是过量 BCAA 与脂肪堆积之间的一条重要联系。
•关键点:BCAA 分解”卡”在哪里,决定了它的危害面。卡在第一步/第二步(BCKA 堆积),会引起胰岛素抵抗与炎症;卡在更下游(氧化不全),则可能把碳流推向脂肪生成与活性氧(ROS)。这两个”堵点”是后文大量疾病的共同底层机制。
4. 全身BCAA分解的组织分工
研究者用小分子同位素(13C)追踪技术,第一次量化了小鼠全身 BCAA 的去向,结果非常直观:
▸ 肌肉量少的人共容易BCAA堆积
人体骨骼肌承担了大约六成的全身 BCAA 分解任务,脂肪组织约两成,肝脏只占一成左右。
这个分工能解释了为什么肌肉量少、久坐、肥胖、脂肪与肝脏代谢异常的人,更容易出现 BCAA 堆积:因为最重要的”处理车间”(肌肉)产能不足或”罢工”了。
研究还发现,糖尿病状态下,BCAA 氧化会从脂肪和肝脏”转移”到肌肉,是机体为适应代谢状态的一种代偿性重排。
接下来,在讨论”BCAA 有害还是有益“之前,先要看清它们在正常生理状态下的作用。作为必需氨基酸与信号分子,BCAA 参与了人体多个核心过程。
1. 肌肉:蛋白合成、抗分解与能量储备池
骨骼肌是消耗BCAA最多、也是其发挥作用的主要组织。BCAA,尤其是亮氨酸,可激活mTORC1信号通路,促使其磷酸化下游的S6K1和4E-BP1,进而促进肌肉蛋白合成、抑制分解,并增加肌纤维的尺寸与质量。
动物研究还发现,补充BCAA可促进线粒体生物合成,并提高抗衰老分子Sirt1的表达。这些作用构成了BCAA用于运动营养和老年肌少症干预的理论基础。
不过,促进合成也有两面性:适量激活有助于增肌、维持肌力;长期过度激活mTORC1,则可能干扰胰岛素信号(后文详述)。
2. 脂肪组织:参与脂肪细胞分化、产热与”燃脂”
脂肪组织是BCAA的第二大代谢器官。正常情况下,BCAA进入脂肪细胞后,可作为脂肪细胞分化的底物,并通过单甲基支链脂肪酸(mmBCFA)途径参与脂质从头合成。
编辑
棕色脂肪组织(BAT)也是BCAA氧化的第二大场所:受寒冷刺激时,它会借助新发现的转运体SLC25A44摄取血液中的BCAA,将其用作产热底物。这一发现表明,BCAA也能直接参与能量消耗。
3. 肝脏:合成白蛋白与葡萄糖的”原料供应商”
肝脏虽不是BCAA分解的主要场所,却会大量摄取BCAA用于蛋白质合成。BCAA是合成白蛋白的重要氮源,这一点已有实验支持。
因此,临床上会为肝硬化或肝功能不全患者使用BCAA制剂,以提供蛋白合成原料,同时避免加重肝脏的代谢负担。
4. 全身:能量供应、血糖调节与免疫、神经
BCAA 参与葡萄糖代谢的调节:它们可以通过抑制丙酮酸脱氢酶复合物等环节影响糖的氧化利用;在长时间运动或饥饿时,肌肉蛋白降解、BCAA 氧化增强,为全身供能。
编辑
此外,BCAA 作为氮供体参与免疫细胞的增殖与功能维持,还参与大脑横跨血脑屏障的“谷氨酸-谷氨酰胺循环”,为神经递质的合成提供底物。这一点在后面的神经系统疾病部分还会展开。
当 BCAA 不能被及时、顺畅地代谢掉,它们在血液里的浓度就会升高,并带来一系列连锁反应。大量人群研究已经反复观察到这一现象。
1. 与肥胖与胰岛素抵抗、2型糖尿病正相关
这是证据最充分、研究最深入的一条关联。多项研究显示,血浆 BCAA水平与肥胖、胰岛素抵抗、2 型糖尿病(T2D)存在稳定的正相关,且这种关联跨越不同种族人群。人群研究还发现:
膳食 BCAA 摄入量与血脂异常风险相关,膳食异亮氨酸摄入量与BMI正相关;
缬氨酸的分解中间产物 3-羟基异丁酸(3-HIB)水平,与 T2D 和胰岛素抵抗的发病率正相关,也与胰岛素水平和 HOMA-IR 正相关;
BCAA 分解通路相关基因(如 PPM1K、BCAT2、BCKDHA)的单核苷酸多态性(SNP),与更高的血清 BCAA 水平和更高的代谢病风险相关;
反过来,与胰岛素抵抗相关的基因变异,也强烈关联更高的循环 BCAA 水平。
更重要的是,BCAA不仅是疾病的“旁观者”或标志物,也可能是致病介质——这是近年研究认识的重要转变。机制上,升高的BCAA/BCKA可损害胰岛素信号、抑制脂肪生成、诱发炎症,并导致脂毒性,尤其影响肌肉和肝脏。
2. 与脂肪肝风险存在相关性
在非酒精性脂肪性肝病(现称代谢相关脂肪性肝病,MAFLD)中,循环 BCAA 与 BCKA 同样升高。BCKA 水平与肥胖/T2D、非酒精性脂肪性肝炎(NASH)相关。
研究提示,BCAA 可通过促进脂肪细胞脂解和抑制肝脏自噬,加重肥胖/糖尿病小鼠的肝脏损伤。此外,肥胖伴肝脂肪变性人群的肠道菌群,也表现出更强的BCAA 生物合成潜力。
3. 心血管疾病
BCAA 升高与心血管疾病(CVD)风险增加相关,包括前瞻性队列研究发现的关联。机制涉及脂毒性、血管内皮脂肪酸转运异常(如 3-HIB 促进血管脂肪酸转运)以及慢性炎症。
编辑
在心肌层面,BCAA 分解的缺陷与心脏胰岛素抵抗、心脏功能受损相关。
4. 糖尿病肾病与糖尿病并发症
糖尿病肾病(DMN)是糖尿病的重要微血管并发症。一项整合了临床、菌群分类、基因和代谢物分析的研究发现:与健康对照相比,DMN 患者粪便中缬氨酸、异亮氨酸、蛋氨酸等水平更高,且这六种代谢物与临床指标的随机森林分析显示,蛋氨酸和 BCAA 是区分 DMN 组与对照组最重要的特征之一(仅次于 eGFR 和蛋白尿)。
研究还发现,DMN 患者肠道中富集的若干菌种携带更多参与BCAA 和蛋氨酸生物合成的基因——这为”肠道菌群参与糖尿病肾病发病”提供了直接证据。
5. 神经系统疾病:脑卒中与帕金森病
BCAA 与神经系统的关系呈现出复杂性,值得单独说明。
▸ 缺血性脑卒中存在显著的 BCAA 累积
一项研究发现,缺血性脑卒中患者和缺血/再灌注(I/R)模型大鼠均存在显著的BCAA累积,且与肠道菌群失调和卒中进展密切相关。
研究进一步发现,瑞士乳杆菌(Lactobacillus helveticus)和短乳杆菌(Lactobacillus brevis)受卒中影响显著;定植这两种益生菌可减轻BCAA累积,并发挥神经保护作用。
机制上,BCAA累积会激活AKT/STAT3/NF-κB通路,加剧小胶质细胞介导的神经炎症。这些发现提示,菌群失调可能通过BCAA累积和神经炎症加重卒中,也显示了益生菌干预的潜力。
▸ 帕金森病患者BCAA水平降低
与其他疾病中的发现不同,帕金森病(PD)患者的BCAA和芳香族氨基酸(AAA,如酪氨酸)水平似乎降低。一项纳入106名患者和114名对照的研究发现,水平越低,往往与病程更长、MDS-UPDRS评分更高、左旋多巴剂量更大及疾病分期更重相关。这可能与患者能量消耗增加、胃肠功能障碍影响吸收,以及左旋多巴与BCAA竞争小肠立体特异性转运系统有关。
此外,患者肠道中参与BCAA合成的菌群基因(如ilvB、ilvC、ilvD、ilvN)减少,粪便BCAA浓度也随之降低。
▸ BCAA需要在一个合适的水平,过高过低都不好
卒中患者BCAA升高并伴有菌群失调,而帕金森病患者BCAA降低、菌群合成能力减弱。这表明,BCAA与神经健康并非越高或越低越好,维持适宜水平才是关键,也体现了BCAA兼具营养作用与稳态调节需求。
6. 癌症与恶病质:因组织而异
在肿瘤领域,BCAA 的角色更显微妙。一方面,在某些肿瘤发生过程中,BCAA 分解能力的丧失会增强 mTORC1 活性、促进肿瘤发展;另一方面,肿瘤微环境也可能争夺 BCAA 供给。
编辑
doi: 10.1038/s41392-023-01569-3
而在恶病质中,BCAA 又是维持肌肉蛋白合成、对抗肌肉流失的营养支持手段。这说明在癌症与消耗性疾病的营养支持中,BCAA 的使用需要“因时、因病、因人”地权衡,而非一刀切。
编辑
doi: 10.1038/s41392-023-01569-3
注:一个必须澄清的误区:”BCAA 升高 = 吃太多 BCAA”并不成立。在很多情况下,升高是因为身体处理 BCAA 的能力(而非摄入量)出了问题——这恰恰是代谢病的一个标志。所以,看到 BCAA 指标偏高,重点不是急着”戒肉”,而是排查背后的代谢与菌群状态。
要真正理解 BCAA 与健康的关联,就得知道在肥胖和糖尿病状态下,是哪些组织”掉链子”了。答案集中在三个核心代谢器官:脂肪组织、骨骼肌和肝脏。
▸ 脂肪组织:从BCAA代谢场所→炎症的来源
生理状态下,健康脂肪组织可高效处理BCAA:通过SLC1A5、SLC3A2/SLC7A5等转运体将其摄入脂肪细胞,并将部分碳骨架转化为参与脂质合成的单甲基支链脂肪酸(mmBCFA)。此外,BCAA分解通路与PPARγ相关的脂肪细胞分化密切相关,有助于维持脂肪组织功能。
▸ 肥胖和糖尿病患者脂肪组织处理BCAA改变
然而,肥胖和糖尿病会显著改变这一过程:
分解酶减少、抑制因子增加:BCKDHA、BCAT2 等促进 BCAA 分解的蛋白在脂肪组织中减少,而负向调控因子(BCKDK、Ser293 磷酸化的 BCKDHA)增加——BCAA 分解被显著抑制;
缺氧与纤维化:脂肪组织过度增生(肥大)会加剧局部缺氧,而缺氧会抑制 BCAA 分解、减少脂肪细胞对 BCAA 的摄取,并把 BCAA”改道”推向脂质生成;
炎症恶性循环:升高的 BCAA/BCKA 会促进脂肪组织中的巨噬细胞向促炎的 M1 型极化,分泌 TNF-α、IL-1β、MCP-1 等炎症因子;而炎症又反过来抑制 BCAA 分解。两者形成”越炎越堵、越堵越炎”的恶性循环;
影响产热:BCKA 还会通过乙酰化 PRDM16 等机制,抑制白色脂肪”米色化”——也就是削弱脂肪燃烧、增加能量储存。
编辑
还有一条值得关注的自分泌环路:脂肪细胞中转运体 SLC7A10 功能受阻时,会促使 BCAA 转向生成 3-HIB;而皮下脂肪 SLC7A10 表达与 BCAA 水平呈负相关。3-HIB 正是那个与胰岛素抵抗强相关的缬氨酸中间产物。
▸ 骨骼肌:BCAA代谢能力受损后果严重
骨骼肌承担约59%的全身BCAA分解,同时也是最大的葡萄糖摄取组织,经GLUT4摄取约70%的全身葡萄糖。因此,肌肉BCAA代谢异常可能产生广泛影响。
在2型糖尿病(T2D)的早期和晚期,肌肉中的BCAA及其分解产物BCKA均会升高,这可能与BCAA分解酶表达下降有关。此外,BCAA还可能通过两种机制损害胰岛素作用:
mTORC1 过度激活:亮氨酸持续、过量地激活肌肉 mTORC1,会通过负反馈磷酸化 IRS-1(胰岛素受体底物 1),削弱胰岛素信号;
BCKA 直接抑制摄取:BCKA(如亮氨酸的酮酸)会抑制 AKT 磷酸化,从而阻断胰岛素刺激的葡萄糖摄取。
编辑
当肌肉氧化磷酸化(OXPHOS)受损时,BCAA碳流可能偏离三羧酸循环,转而促进新生脂肪生成并增加活性氧产生。因此,肌肉既可清除BCAA,也可能因代谢功能受损而成为BCAA积累和胰岛素抵抗的主要部位;其作用取决于代谢状态和运动水平。
▸ 肝脏:从代谢底物储库到脂毒性与炎症反应的放大器
尽管肝脏仅承担约8%的BCAA分解,其对全身BCAA稳态仍具有重要影响。肥胖或糖尿病状态下,肝脏BCAA分解相关蛋白减少,负向调控因子增加。BCAA及BCKA升高可通过抑制肝脏自噬、促进脂肪组织脂解等途径,加剧脂质蓄积和肝损伤。
此外,组织间还存在复杂的代谢互作:例如,棕色脂肪中BCAA衍生氮合成受阻,可能导致肝脏氧化应激增加、胰岛素信号减弱。
总体而言,肥胖或糖尿病可引发脂肪组织缺氧与炎症,并降低肌肉和肝脏中BCAA分解酶的表达,削弱全身BCAA清除能力,导致血浆BCAA/BCKA升高。二者进而损害胰岛素信号、促进炎症和脂毒性,进一步加重组织功能障碍,形成持续的代谢恶性循环。
肌肉、肝脏和脂肪组织是BCAA代谢的主要调控者,而肠道菌群也是日益受到关注的重要参与者。肠道微生物既可合成也可利用BCAA,从而影响血液中的BCAA水平。
★ 肠道菌群:BCAA合成与代谢的重要参与者
多项研究证实,肠道细菌自身拥有一套完整的 BCAA 生物合成通路。人群研究提供了直接证据:
普雷沃氏菌(Prevotella copri)和普通拟杆菌(Bacteroides vulgatus)这两种具备 BCAA 合成能力的肠道细菌,在胰岛素抵抗者体内与循环 BCAA 水平正相关;
宏基因组分析显示,在胰岛素抵抗人群中,菌群中负责 BCAA”合成”的基因表达升高,而负责”转运”的基因表达下降;
在饮食诱导肥胖(HFD)和链脲佐菌素(STZ)诱导的糖尿病大鼠中,菌群中 BCAA 生物合成基因的丰度同样更高;
在肥胖伴肝脂肪变性女性中,肠道菌群也表现出更强的 BCAA 生物合成潜力。
这些证据提示,肠道菌群合成的BCAA可被肠道吸收并进入体循环,从而影响血浆BCAA水平。因此,即使膳食BCAA摄入不变,菌群组成变化也可能导致血浆BCAA波动。
▸ 菌群与宿主的”互相塑造”
▸ 菌群与BCAA存在双向调控
肠道菌群可通过合成、消耗和转化影响宿主BCAA水平;宿主的饮食、胆汁酸和免疫状态也会塑造菌群结构。
研究表明,BCAA还可影响肠道发育、营养转运和免疫功能,促进肠道健康;富含BCAA的混合物甚至可能逆转部分年龄相关的菌群变化。因此,补充或限制BCAA的效果可能因个体的代谢和菌群状态而异。
编辑
肠道菌群既能合成也能消耗BCAA。若菌群偏向合成(如P. copri、B. vulgatus增多或相关合成基因活跃),循环BCAA可能升高;若部分具有BCAA消耗能力的益生菌(如某些乳酸杆菌)减少,BCAA也可能更易累积。因此,调节菌群可能成为影响BCAA代谢的途径之一。
▸ “菌群—BCAA—疾病”三条主线
(1)胰岛素抵抗与糖尿病:菌群的 BCAA 合成能力升高,是胰岛素抵抗人群的一个特征性变化;反之,改善菌群有助于降低循环 BCAA、改善胰岛素敏感性。
(2)糖尿病肾病:DMN 患者肠道中富集的菌种携带更多 BCAA 合成基因,其粪便 BCAA与蛋氨酸水平也更高,且这些指标在区分患者与健康人时具有重要价值。这提示菌群调控的 BCAA 可能参与了糖尿病肾病的发病或进展。
(3)脑卒中:缺血性脑卒中患者与动物模型都出现BCAA 累积,并伴随菌群失调;下调的乳酸杆菌被认为是 BCAA 累积的重要风险因素,而补回这些菌能显著缓解 BCAA 累积并发挥神经保护作用。
▸ 肠道菌群影响BCAA代谢的五种机制
肠道菌群通过哪些具体且可干预的途径影响BCAA?以下梳理五种较明确的机制。
① 直接合成与消耗:调节BCAA供给
这是最直接的一条,部分菌(如P.copri、B.vulgatus)可合成并释放BCAA,经肠道吸收后进入血液;另一些菌(如部分乳酸杆菌和链球菌)则会消耗BCAA用于生长。因此,菌群的合成与消耗平衡可能影响循环BCAA的基线水平。
② 短链脂肪酸:菌群代谢的”下游信使”
菌群发酵膳食纤维产生的短链脂肪酸(乙酸、丙酸、丁酸),是菌群影响宿主代谢的核心介质。它们的作用包括:
丁酸是肠道上皮的主要能量来源,具有抗炎作用,并调节肠屏障;
丙酸促进饱腹感、抑制肝脏脂肪合成;
SCFA 还能刺激肠道内分泌细胞分泌 GLP-1,改善血糖调控。
菌群代谢产物与BCAA也会相互影响。例如,芳香族氨基酸代谢产物苯乙酸可增强肝细胞对BCAA的利用及脂质生成;菌群发酵产生的乙酸则可能通过调节肝脏代谢,减少肝脂肪堆积。
③ “肠—肝轴”:把肠道信号送进肝脏代谢
肠道来源的 BCAA、SCFA、次级胆汁酸等经门静脉首先抵达肝脏,直接影响肝脏的糖脂代谢与 BCAA 利用。肥胖人群肠道菌群更强的 BCAA 合成潜力,可能就是通过这条轴推高循环 BCAA、加重肝脂肪变性的。
④ “肠—脑轴”:BCAA 与神经炎症的连接线
肠道菌群通过代谢物、免疫信号和神经通路与大脑双向沟通。在脑卒中的研究中,菌群失调导致的 BCAA 累积,被认为通过激活 AKT/STAT3/NF-κB 通路加剧小胶质细胞神经炎症。
而 BCAA 本身也是大脑合成谷氨酸、GABA等神经递质的氮供体,参与”谷氨酸-谷氨酰胺循环”。菌群—BCAA—神经炎症/神经递质,构成了一条真实的肠脑通路。
⑤ 菌群是影响运动应答的关键因素之一
运动带来的代谢改善因人而异,“不应答者”比例为7%—69%。这种差异与肠道菌群及其代谢物有关:应答者短链脂肪酸和GABA合成增加、BCAA水平下降;不应答者则相反。这提示,运动结合菌群调节(如补充植物化学物)或有助于改善单靠运动效果不佳者的代谢状况。
但也需注意,在饮食诱导肥胖小鼠中,补充BCAA会抵消运动对胰岛素敏感性和内脏脂肪脂质生成的改善作用。因此,健身时同时大量补充BCAA未必有益。
读到这里,你可能会困惑:BCAA 一会儿是肌肉营养,一会儿又是疾病风险,到底该怎么看?科学界对这个问题也仍在争论,但已经能梳理出清晰的框架。
少一点更好”的证据(限制 BCAA):
限制膳食 BCAA 摄入,可改善血糖控制、减少脂肪量、改善脂肪组织线粒体功能,甚至延长小鼠寿命;在肥胖和糖尿病的人与动物中,BCAA 限制也带来代谢改善。
更有意思的是,一项更精细的研究指出,限制 BCAA 的代谢益处主要来自异亮氨酸和缬氨酸,而非亮氨酸,其机制部分通过激活肝脏分泌的成纤维细胞生长因子 21(FGF21)实现——FGF21 能提升能量消耗与胰岛素敏感性。
多一点也有用”的证据(补充 BCAA):
另一方面,亮氨酸补充被报道能增强胰岛素信号、促进线粒体生物合成、减少脂质堆积、降低体重与脂肪量。在老年肌少症、肝病、某些消耗状态中,BCAA 补充又确实有益。
怎么理解这种矛盾?四个关键变量
这些看似冲突的结论,其实取决于以下几个变量:
•个体底子(代谢状态):健康人、代谢病人、老年人、消耗状态患者的“最优 BCAA 摄入”并不相同;
•三种 BCAA 各有”个性”:亮氨酸、异亮氨酸、缬氨酸对 mTOR 的活性、下游代谢产物都不一样,不宜”一锅端”;例如代谢损害的”罪魁”更可能是异亮氨酸和缬氨酸;
•氨基酸之间的”配比”:BCAA 与色氨酸、苏氨酸等的比例,也会影响干预效果;
•干预方式与剂量:是”降低总摄入””单独补充亮氨酸”,还是”限制某一种”,不同的实验设计会得出不同结论。
目前较谨慎的共识是,BCAA并非绝对的“好”或“坏”,维持稳态更重要。代谢健康者通常通过正常饮食即可;有胰岛素抵抗、脂肪肝或糖尿病者,则应关注BCAA总量与组成(尤其异亮氨酸和缬氨酸)、促进其分解并维护肠道菌群,而非只纠结于补或不补。
限制BCAA的风险:避免走极端
必须强调,无节制地限制 BCAA 同样有代价:
BCAA 是维持肌肉量与肌力的关键,尤其对本身就面临肌肉流失的老年人;
大脑中约三分之一用于合成神经递质谷氨酸的氨基来自 BCAA,低血浆缬氨酸水平与更快的认知衰退相关;
BCAA 限制还可能削弱免疫功能、增加感染易感性。
因此,任何针对 BCAA 的干预都应当是个体化的,并密切监测疗效与潜在副作用。这也再次说明,”精准、平衡”而非”越多越好/越少越好”才是正确思路。
本文的重点是把前述机制转化为明天就能实践的行动。以下建议依据现有较明确且安全的证据;涉及疾病诊断或治疗时,请咨询专业医生。
哪些人应该特别关注自己的BCAA状态?
以下人群值得留意循环 BCAA 相关指标与代谢状态:
超重/肥胖,尤其腹型肥胖的人;
已诊断胰岛素抵抗、糖尿病前期、2 型糖尿病的人;
有脂肪肝(NAFLD/MAFLD)的人;
有代谢综合征、心血管风险的人;
久坐、肌肉量偏少的人;
长期高蛋白饮食、或长期大剂量服用 BCAA 补剂的健身人群(需要评估是否有必要)。
关于”检测”:能查什么,别过度解读
在临床与研究中,可能涉及的相关指标包括:
血液氨基酸/代谢组学:血浆 BCAA(亮氨酸、异亮氨酸、缬氨酸)、BCKA、3-HIB 等;
糖代谢指标:空腹血糖、胰岛素、HOMA-IR、HbA1c;
肝胆与血脂:肝功能、肝脏超声/脂肪定量、血脂谱;
菌群检测:宏基因组/16S 测序,可评估菌群中与 BCAA 合成相关的基因与菌属(如 Prevotella、Bacteroides 等)。
需注意,BCAA代谢组学和菌群合成基因检测目前主要用于研究,并非常规体检项目。即使检测,也应由专业人士结合血糖、胰岛素和肝脏影像等综合评估,切勿凭单项结果自行判断或用药。
▸ 饮食层面:吃对结构,而不是简单”多吃/少吃蛋白”
饮食上可以这样做:
蛋白”够用即可”,不长期过量:一般健康成人按体重摄入适量优质蛋白(如约 1.0 g/kg/天上下,具体因人而异),不必为了”养生”或”增肌”长期超量摄入;已有胰岛素抵抗、脂肪肝的人尤其要注意避免长期高 BCAA 负荷;
蛋白质来源多样化:在肉、蛋、奶、鱼、豆、坚果之间轮换,避免单一来源长期过量;
大幅提高膳食纤维:全谷物、豆类、蔬菜、水果、菌菇、海藻——这是给产 SCFA 有益菌的”口粮”,也是调节菌群最有力的日常手段;
多吃富含多酚/黄酮的植物性食物:深色蔬果、柑橘、茶、桑叶、海藻等,对应 9.3 节中多种植物化学物的正向证据;
控制超加工食品与添加糖:它们不利于健康菌群与代谢,间接恶化 BCAA 稳态;
不必”谈肉色变”:BCAA 是必需营养,正常吃是必须的,重点是总量与结构,而非完全杜绝。
▸ 运动层面:激活肌肉代谢功能
有氧 + 抗阻结合:有氧运动激活 BCKDH、促进 BCAA 氧化,抗阻训练维持肌肉量与胰岛素敏感性;
规律至上:把运动当作”开启 BCAA 分解通路”的日常开关,而非偶尔突击;
运动前后慎补 BCAA:文献提示运动的同时补充 BCAA 可能抵消运动改善胰岛素敏感性的收益,对以代谢改善为目标的人尤其要注意。
▸ 菌群层面:把”合成型”扳回”平衡型”
膳食纤维与多样化的植物性食物是根本(同上);
发酵食品(无糖酸奶、开菲尔、发酵豆制品等)有助于丰富菌群;
谨慎对待益生菌:文献提到某些乳酸杆菌(如 L. helveticus、L. brevis)在卒中模型中能降低 BCAA 累积、发挥保护作用,但这类结论多来自动物模型,具体菌株、剂量与适用人群需循证,不建议自行长期大量服用”补 BCAA”或”降 BCAA”的益生菌;
慎用抗生素与不必要的药物:菌群一旦被破坏,恢复需要时间;
体重管理:减重本身就能改善脂肪组织缺氧与炎症、恢复 BCAA 分解能力。
▸ 医疗层面:把”靶向 BCAA”交给专业判断
激活 BCAA 分解的药物(如 BT2、苯丁酸钠 NaPB、部分具有 BDK 抑制作用的药物)已进入临床研究,部分显示出改善胰岛素敏感性的潜力,但仍需更大规模的人体试验验证。这些属于医生处方与研究范畴,绝不可自行尝试。
三条”最小可执行”原则:①蛋白够用不多吃,来源多样化;②纤维与植物性食物拉满,把菌群养好;③规律运动,让肌肉重新成为 BCAA 的”清道夫”,且运动时别盲目补 BCAA。
注:本文基于公开发表的科研文献进行科普解读,仅作交流参考,不作为诊断及医疗依据。个体饮食调整,请结合自身情况并咨询专业人员。
主要参考文献
Mansoori S, Ho MY, Ng KK, Cheng KKY. Branched-chain amino acid metabolism: Pathophysiologicalmechanism and therapeutic implication. Obesity Reviews. 2025;26(2):e13856.
Bifari F, Ruocco C, Decimo I, Fumagalli G, Valerio A, Nisoli E. Amino acid supplements and metabolicnealth: a potential interplay between intestinal microbiota and systems control. Genes & Nutrition.2017:12:27.
Bo T, Fujii J. Primary Roles of Branched Chain Amino Acids (BCAAs) and Their Metabolism in
Physiology and Metabolic Disorders. Molecules. 2025;30(1):56.
Iwao M, Gotoh K, Arakawa M, et al. Supplementation of branched-chain amino acids decreases fataccumulation in the liver through intestinal microbiota-mediated production of acetic acid. ScientificReports. 2020;10:18768.
Shen J, Guo H, Liu S, et al. Aberrant branched-chain amino acid accumulation along the microbiota-gut-brain axis: a new potential target for ischemic stroke. British Journal of Pharmacology.
2023;180(3):347-368.
Zhang Y, et al. Alterations of plasma branched-chain and aromatic amino acids in patients with
Parkinson’s disease and their association with gut microbiota. npj Parkinson’s Disease. 2022;8:48.
Kim JE, Nam H, et al. Gut Microbial Genes and Metabolism for Methionine and Branched-Chain
Amino Acids in Diabetic Nephropathy. Microbiology Spectrum. 2023;11(2):e02344-22.
Nie C, He T, Zhang W, Zhang G, Ma X. Branched Chain Amino Acids: Beyond Nutrition Metabolism.
International Journal of Molecular Sciences. 2018;19(4):954.
谷禾健康
普雷沃氏菌属(Prevotella)在肠道内占据着极其特殊而复杂的地位。作为拟杆菌门的重要基石成员,普雷沃氏菌广泛定植于人群的肠道、口腔及泌尿生殖道,并因其卓越的复杂植物性碳水化合物分解能力,被确立为非西方化传统高纤维饮食人群肠道微生态的核心代表(普雷沃氏菌型)。
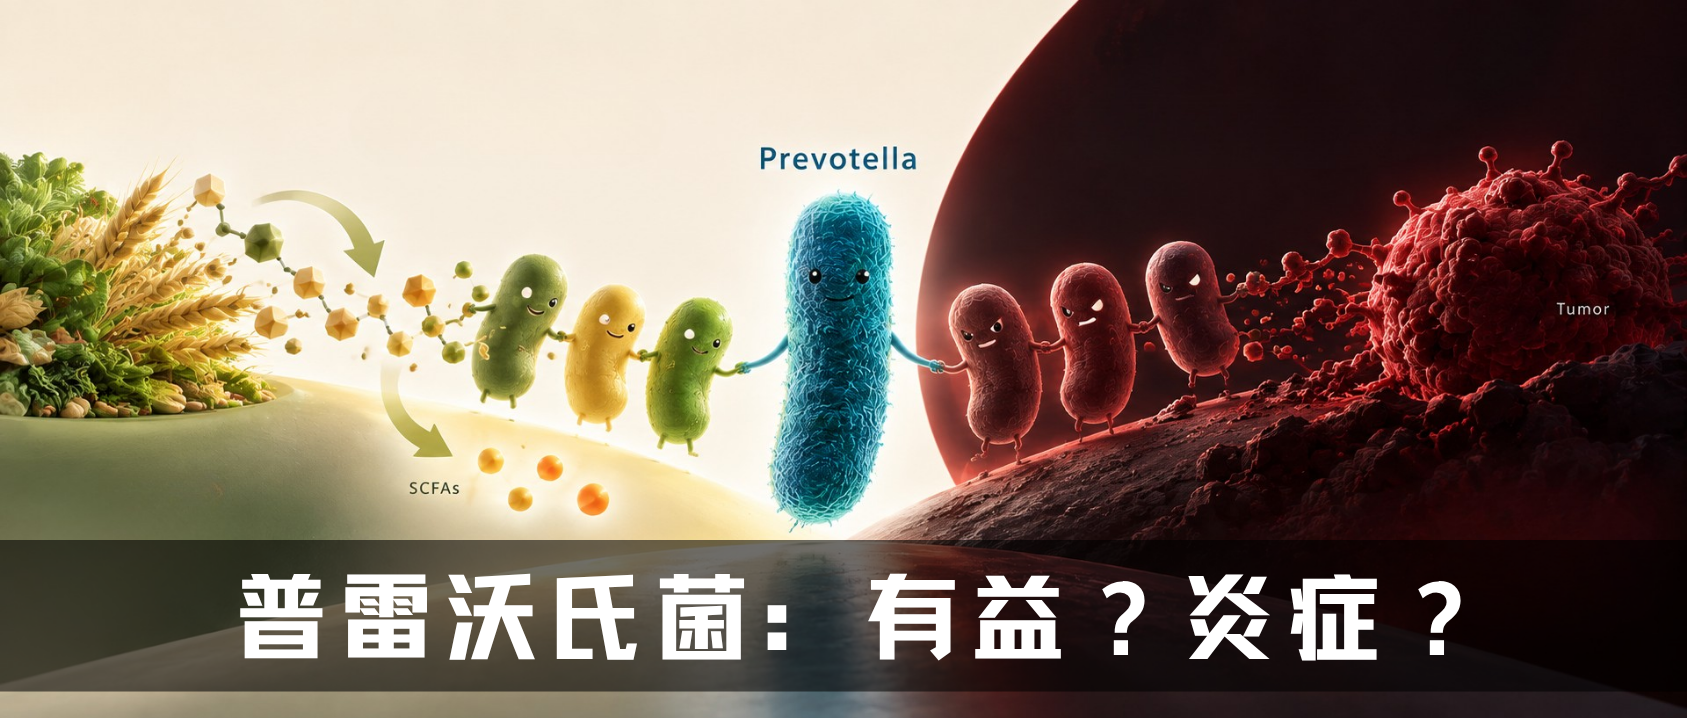
普雷沃氏菌在医学界呈现出令人困惑的“功能悖论”与“双刃剑”效应:一方面,它被视为发酵膳食纤维、合成保护性短链脂肪酸并维护宿主代谢与黏膜稳态的基石有益菌;另一方面,多项临床与流行病学研究将其与牙周炎、细菌性阴道病、类风湿性关节炎、代谢综合征以及胃肠道恶性肿瘤的恶化直接关联。
这种“天使与恶魔”并存的矛盾现象,使普雷沃氏菌属成为微生物学界最引人入胜、也最具转化挑战的研究对象之一。
随着宏基因组学与高通量测序的普及,人们逐渐解开了其“属水平丰度”背后的复杂性。研究者发现,普雷沃氏菌属并不是一个功能完全一致的整体,不同物种、不同菌株之间在碳水化合物利用、黏液降解、代谢产物生成、宿主黏附以及免疫调控等方面存在显著差异。换言之,“普雷沃氏菌增多”本身并不能直接等同于健康,也不能简单地被视为疾病标志。
菌株、饮食、群落、位置
决定功能方向的第一层,饮食提供了什么底物
微生物的功能都需要底物。一个拥有复杂多糖发酵能力的菌株,生活在富含阿拉伯木聚糖、果聚糖和其他可发酵纤维的肠道里,与长期生活在低纤维、高脂肪、高动物蛋白环境中的同类,代谢状态并不相同。
欧美人群的多是高脂代谢菌株,东亚人群多为谷物纤维代谢菌株。
同样一套代谢机器,输入不同,输出自然不同
高纤维饮食提供大量植物多糖(长期摄入全谷物、豆类、根茎、蔬菜等食物),容易把整个生态系统的碳流推向发酵和短链脂肪酸网络。
西方化饮食则改变可利用底物结构(高脂、高动物蛋白、低纤维饮食),也改变胆汁酸、黏液层、氧化还原状态和菌群竞争关系。
注:其他因素比如肠道转运速度会影响细菌可利用底物和停留时间;黏膜通透性决定细菌是否容易接触免疫系统;胆汁酸组成改变不同菌的竞争优势;慢性炎症提高硝酸盐、ROS 等电子受体水平;抗生素会突然清空部分竞争者;质子泵抑制剂改变胃酸屏障…这些背后都是很具体的一整套适合某些菌株生存的宿主环境。
决定功能方向的第二层,“邻居”改变它发挥作用的方式
真实肠道里没有任何细菌独自生活。
普雷沃氏菌周围可能是具核梭杆菌,也可能是普拉梭菌;可能处在慢性炎症已经形成的菌群网络中,也可能生活在一个短链脂肪酸生产和交叉喂养高度活跃的稳定社区里。
谷禾凭借专利菌群注释方法,可以基于菌群结构来精细化推断区分近似菌种,实现普雷沃氏菌的细分分型。
它所在生态网络允许什么样的代谢关系存在
如果P. intermedia与Fusobacterium nucleatum同时富集,炎症信号、上皮屏障破坏和免疫抑制可能相互叠加。反过来,普雷沃氏菌产生的乙酸、琥珀酸等中间代谢物,也可以成为其他共生菌的底物,经交叉喂养继续转化为丁酸。
这时候,即使两份肠道菌群检测报告同时都显示“Prevotella丰度占比10%”,其生态含义就不同了。
编辑
决定功能方向的第三层,它住在哪里,决定它面对什么生态位
微生物拥有自己的基因组,但它表现出来的功能,是基因组与所在组织共同“计算”的结果。
P. intermedia在牙周袋里,与它出现在健康结肠腔内,并不是同一件事。
牙龈沟有血红素、炎症渗出、氧化还原改变和持续的组织损伤;
结肠则有厚厚的黏液层、极低氧环境、不同的碳源以及高度组织化的黏膜免疫系统。
食物底物、短链脂肪酸、琥珀酸等
它的核心竞争力,是处理别人吃不动的复杂碳水
普雷沃氏菌属最值得关注的基础生物学,是它对复杂碳水化合物的处理能力。
很多普雷沃氏菌属的基因组里存在成套的多糖利用位点(Polysaccharide Utilization Loci,PULs)。
简单说,一套 PUL 不是单独的一种酶,而是一整套从“识别-抓取-切割-运输-继续降解”串在一起的系统。
外膜上的 SusD 样蛋白负责识别特定多糖,邻近糖苷水解酶把大分子切成较短片段,SusC 类转运蛋白再把寡糖送进周质空间,后续脱支酶和水解酶继续拆解,最终送入中心碳代谢和发酵网络。
因此,高纤维饮食与普雷沃氏菌属丰度之间的关系,本质上是一场生态选择——谁最擅长利用每天源源不断进入肠道的底物,谁就更容易获得增长优势。
高纤维饮食之后,看这些底物最终被怎样利用
复杂多糖经普雷沃氏菌处理之后,可以进入琥珀酸途径,生成乙酸、丙酸等代谢产物;某些与保护性表型相关的菌株,如P. melaninogenica、P. rothiae,又与丁酸相关的代谢网络联系在一起。
这些代谢物随后被宿主上皮吸收,也可能被其他细菌继续利用。
这意味着,“普雷沃氏菌属丰度上升”只是生态变化的第一层。再往下一层,需要看它是否伴随丙酸、丁酸等功能产物增加;继续往下,还可以观察宿主屏障、免疫细胞和代谢表型是否随之改变。
这也是为什么,单纯说“吃纤维可以增加某一种菌”其实略显粗糙。更需要观察的是,碳最终流向哪里。
发酵能力相似,代谢输出可以完全不同
琥珀酸在这里尤其有意思。
它既可以是细菌代谢网络中的正常中间产物,也可以在特定失衡状态下大量积累。研究表明,过多琥珀酸进入上皮细胞后,可影响 HIF-1α 稳定性以及细胞应激状态,并进一步牵动内质网应激和炎症反应。
于是,一个原本属于“碳水发酵”的代谢节点,开始与上皮损伤和慢性炎症连接起来。
这就是微生物代谢研究里一个很重要的思维方式:同一种代谢物,在不同浓度、不同组织位置以及不同宿主状态下,可能产生完全不同的生物学效应。
短链脂肪酸如此,琥珀酸也是如此。
P. copri 的争议,还提示了另一条代谢分叉:支链氨基酸
在部分菌株中,与亮氨酸、异亮氨酸等支链氨基酸合成相关的基因更丰富;在特定饮食和宿主代谢背景下,这类代谢能力被认为可能参与胰岛素抵抗相关表型。
也就是说,讨论P. copri时,还需要看“它是哪一个株系、携带哪些代谢模块”。
从复杂多糖到短链脂肪酸,从琥珀酸到支链脂肪酸,普雷沃氏菌更像一个具有高度可塑性的代谢平台。
环境决定哪一套程序获得优势。
想了解更多细节的朋友可以滑动阅览:
普雷沃氏菌属于拟杆菌门、拟杆菌纲、拟杆菌目、普雷沃氏菌科,多为革兰氏阴性、无芽孢、无鞭毛的专性厌氧杆菌。
其外膜含 LPS;部分物种具有 IX 型分泌系统(T9SS),可将黏附蛋白、蛋白水解酶及其他底物转运至细胞表面,部分分子也可通过外膜囊泡(OMVs)进入周围环境。
不同物种和菌株基因组差异较大,部分菌株还携带 β-内酰胺、大环内酯、四环素相关抗性基因及可移动遗传元件。
对于理解炎症和菌株安全性,以上这些结构特征也很重要。
<向上滑动阅览>
前面这些菌株、饮食和群落差异,最终会落到宿主身上。
在高膳食纤维环境中,部分 Prevotella参与复杂碳水发酵,产生乙酸、丙酸、琥珀酸等代谢物,并通过交叉喂养支持其他产丁酸菌,从而提高整个群落的短链脂肪酸输出。增加的丁酸等短链脂肪酸,有利于维持肠屏障和免疫稳态。
编辑
另一方向上,某些促炎相关Prevotella 菌株可以通过 LPS 和其他微生物组分激活TLR4/NF-κB、TLR2-Th17-IL-17 等炎症通路;琥珀酸等代谢变化还可能增加上皮应激和屏障损伤。持续的炎症与屏障破坏相互强化,局部环境便逐渐从短暂免疫反应转向慢性炎症。
编辑
doi.org/10.3389/fonc.2026.1855577
当这种促炎状态长期存在,它又会怎样进入肿瘤生态?
从单向作用到生态反馈
肿瘤组织自己就是一个特殊生态位。
这里有缺氧、有坏死、有异常血管、有代谢重编程,还有大量功能失调的免疫细胞。这样的环境可以反过来筛选适合在其中生存的细菌。
编辑
某些细菌促进炎症和组织损伤,组织变化又为这些细菌提供新的生态位;细菌继续改变局部代谢与免疫状态,肿瘤细胞也在不断重塑自己的周围环境。
因此,在肿瘤组织里发现普雷沃氏菌属,既可能记录肿瘤生态环境已经发生改变,也可能意味着其中某些菌株参与维持这种环境。
编辑
doi.org/10.3389/fonc.2026.1855577
它经常和具核梭杆菌一起出现
结直肠癌微生物学里,具核梭杆菌(Fusobacterium nucleatum)已经被研究多年。
它拥有FadA、Fap2等黏附和免疫调节相关分子,可以影响 E-cadherin/Wnt-β-catenin 通路、NK/T 细胞功能以及髓系抑制细胞募集。
有意思的是,一些肿瘤样本中 P. intermedia、P. nigrescens 等口源性普雷沃氏菌会和具核梭杆菌共同富集。
两者一旦进入同一个病灶,作用可能发生叠加
具核梭杆菌提供强黏附和免疫逃逸能力
普雷沃氏菌则可能增强蛋白水解、炎症和屏障破坏;
NF-κB、NLRP3、Wnt/β-catenin、STAT3 等信号网络因此彼此衔接。
编辑
doi.org/10.3389/fonc.2026.1855577
这类“微生物协同致癌”证据在体外实验、动物研究以及部分人群观察中都已出现,但人体层面的完整因果链仍需要纵向和干预研究继续验证。
这其实比寻找“某一种癌菌”更接近肿瘤真实生态:
肿瘤里值得研究的单位,很可能不是一种菌,而是一组协同工作的微生物网络。
口-肠轴与异位定植
每天都有大量口腔细菌随唾液进入消化道。大多数时候,它们难以在稳定的下消化道生态系统里建立长期优势。
但牙周炎、胃肠屏障损伤、局部炎症、药物和菌群失衡会改变这一门槛。
编辑
doi.org/10.3389/fonc.2026.1855577
P. intermedia、P. nigrescens等口源菌就可能通过吞咽进入消化道,也可能在牙龈屏障破损时进入循环。对于已经具有坏死、缺氧和黏膜结构破坏的肿瘤组织,这些菌获得了定植机会(此前没机会定植)。
微生物影响肿瘤,还深入到表观遗传层面
慢性炎症不仅改变细胞因子浓度,也会影响宿主细胞的转录和表观遗传程序。在普雷沃氏菌相关研究中:
一条路线涉及 DNA 甲基化
长期 IL-6、IL-1β 等炎症信号可影响 DNMT 等 DNA 甲基转移酶,从而改变包括 CDKN2A/p16 在内的抑癌相关基因表达。
另一条更前沿的路线涉及 m6A RNA 修饰
已有研究把普雷沃氏菌相关炎症环境与METTL3 上调联系起来;METTL3 介导的 m6A 修饰可以改变 c-Myc、STAT3 等转录本稳定性,也与 PD-L1 mRNA 稳定性及免疫逃逸相关。
它出现在癌变过程的哪一步?
结直肠癌研究里,P. intermedia 是目前相对受关注的物种之一。
2022 年的一项研究在结直肠腺癌组织中发现P. intermedia富集,并观察到它与具核梭杆菌共同存在时,对癌细胞迁移和侵袭表现出叠加效应。随后还有研究在控制肠道转运时间、粪便钙卫蛋白和 BMI 等混杂因素后,继续观察到P. intermedia与结直肠癌的相关性。
这类证据开始连接组织定位、菌群协同和功能实验。可人体癌变往往跨越十几年甚至几十年。研究者最终需要解决的是时间顺序:菌群改变是在腺瘤之前就出现,还是在肿瘤改变局部环境之后才显著富集?它参与的是癌变启动、进展、免疫逃逸,还是治疗耐药?
这也是为什么纵向队列尤其关键。
胃癌、口腔癌、食管癌,呈现出不同的组合
胃癌中,肿瘤来源的P. intermedia 与疾病进展之间已有研究联系,其中包括 PLIN3 等宿主通路。
口腔鳞状细胞癌的证据更贴近其原生生态位。患者-对照研究发现P. intermedia检出差异,实验研究则观察到其可促进肿瘤细胞增殖、侵袭和炎症因子释放;较新的研究还把肿瘤内P. intermedia与 ISG15、M2 型巨噬细胞极化和免疫抑制微环境连接起来。
食管鳞癌研究中,P. nigrescens 感染与 Ki67、p-STAT3 等增殖信号升高有关。
Prevotella 并不只生活在肠道。口腔、阴道等黏膜部位都可以发现这个菌属,而不同部位提供的营养、氧化还原状态、邻近菌群和免疫环境并不相同。
为什么某些普雷沃氏菌在牙周袋这样的环境里容易扩增?
口腔是普雷沃氏菌属最重要的生态位之一。特别是P. intermedia、P. nigrescens 等产黑色素厌氧菌,与牙周疾病长期联系在一起。
牙龈炎症时,组织出血增加,血红素和铁资源大量进入牙周袋;与此同时,局部氧化还原环境下降,更适合厌氧菌生长。
吸烟为什么也会和口腔 Prevotella 联系起来?
吸烟并不是单纯把某种细菌吸进嘴里。它改变的是局部氧化还原状态、免疫反应、唾液环境和黏膜状态,因此可以重新排列口腔微生物竞争关系。
吸烟者口腔中P. melaninogenica、P. pallens 等物种可发生富集;如果同时存在口腔卫生差、吞咽功能异常等情况,口腔厌氧菌还可能进入下呼吸道。
这里再次说明:生活方式和微生物之间的关系,往往通过改变生态位实现。
P. intermedia的血红素利用和乳铁蛋白相关铁获取能力,这些特征让它在炎症牙周袋中的竞争力明显提高。
牙周炎改变环境 → 环境选择Prevotella → Prevotella 加重局部炎症和组织破坏 → 新的营养和生态位继续释放
编辑
阴道:群落结构决定它能不能扩张
阴道微生态提供了另一个很典型的例子。
健康状态下,乳杆菌通常占据优势,并通过维持较低 pH等方式限制其他微生物扩张。
当乳杆菌减少、乳酸下降、pH 上升,这种稳定结构被打破后,Prevotella bivia等厌氧菌获得新的生态空间。
随后又会出现微生物之间的代谢互利。例如 P. bivia 与 Gardnerella vaginalis可以通过代谢物交换促进彼此生长,帮助致病性生物膜形成。
注:这和肠道里的 普雷沃氏菌和具核梭杆菌协同并不是同一个机制,却在生态学上讲的是同一件事:环境先改变竞争规则,随后微生物之间的合作进一步稳定新的失衡状态。
从黏膜到关节:影响还可以延伸到远端
环境依赖性还有一个更复杂的层面:微生物生活在黏膜,但它引起的免疫变化未必停留在原来的位置。
类风湿关节炎是其中较受关注的例子。
部分研究发现,P. copri与类风湿关节炎人群中的菌群变化存在关联,而 Prevotella相关的 TLR、Th17 和 IL-17 等免疫通路,也被用于解释黏膜微生物变化与远端炎症之间可能存在的连接。
在特定类风湿关节炎模型和宿主背景下,高纤维饮食与 P. copri甚至可能协同加重炎症。
注:营养学进入微生态时代以后,一个越来越清楚的方向,就是从“这种食物平均有什么作用”,走向:这种底物,在这个人的这套菌群里,会被谁利用,最后生成什么?
神经、过敏、IBS 、多发性硬化研究
部分儿童队列中,自闭症谱系障碍与较低 Prevotella丰度出现相关;
一些婴幼儿研究观察到P. copri定植与食物过敏风险存在关系;
多发性硬化动物研究中,Prevotella histicola 显示出增加 Treg、降低 Th17 相关炎症的潜力。
腹泻型肠易激综合征和部分慢性黏膜炎症研究又发现某些Prevotella富集。
这也说明,这个菌属的生物学意义高度依赖宿主免疫状态、组织生态位和具体菌株。
微生态研究早期,人们很自然地希望找到,哪些菌有益,哪些菌有害;少了就补,多了就杀。这很容易理解,也很方便传播。
普雷沃氏菌,也许正使我们放弃“好菌坏菌”的那套思路。
它可以出现在高纤维、短链脂肪酸丰富的肠道生态中;也可以参与 Th17 型慢性炎症。
它可以通过代谢物帮助维护屏障和 Treg 稳态;某些菌株又可以借助 LPS、T9SS、OMVs 和其他机制推动组织损伤。
它可以是人体长期共生生态系统的一部分,也可以在牙周炎、肠道失衡或肿瘤形成的新生态位中获得完全不同的功能位置。
谷禾凭借积累的海量肠道菌群样本,深度提取菌群构成结构中隐含的信息,从不同的健康轴洞察普雷沃氏菌的健康影响。基于健康轴和菌群结构,我们将全面量化普雷沃氏菌的个性化干预策略,让菌群调整更精准。
相关阅读:
肠道重要基石菌属——普雷沃氏菌属 Prevotella
广泛存在于人群的双面使者——Prevotella copri与疾病和健康
主要参考文献
向上滑动阅览
Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75:10–45.
Dammeijer F, et al. The PD-1/PD-L1-checkpoint restrains T cell immunity in tumor-draining lymph nodes. Cancer Cell. 2020;38:685–700.e8.
Lu Z, Tang D. The dual roles of Prevotella in gastrointestinal tumorigenesis: from molecular mechanisms to therapeutic prospects. Frontiers in Oncology. 2026;16:1855577.
Wong CC, Yu J. Gut microbiota in colorectal cancer development and therapy. Nat Rev Clin Oncol. 2023;20:429–52.
Tett A, et al. Prevotella diversity, niches and interactions with the human host. Nat Rev Microbiol. 2021;19:585–99.
Fehlner-Peach H, et al. Distinct polysaccharide utilization profiles of human intestinal Prevotella copri isolates. Cell Host Microbe. 2019;26:680–690.e5.
Gálvez EJC, et al. Distinct Polysaccharide Utilization Determines Interspecies Competition between Intestinal Prevotella spp. Cell Host Microbe. 2020;28:838–852.e6.
Larsen JM. The immune response to Prevotella bacteria in chronic inflammatory disease. Immunology. 2017;151:363–74.
Hao QY, et al. Prevotella copri promotes vascular calcification via lipopolysaccharide through activation of NF-kB signaling pathway. Gut Microbes. 2024;16:2351532.
Tannahill GM, et al. Succinate is an inflammatory signal that induces IL-1b through HIF-1a. Nature. 2013;496:238–42.
Urra H, et al. Endoplasmic reticulum stress and the hallmarks of cancer. Trends Cancer. 2016;2:252–62.
Gur C, et al. Binding of the Fap2 protein of Fusobacterium nucleatum to human inhibitory receptor TIGIT protects tumors from immune cell attack. Immunity. 2015;42:344–55.
Lo CH, et al. Enrichment of Prevotella intermedia in human colorectal cancer and its additive effects with Fusobacterium nucleatum on the Malignant transformation of colorectal adenomas. J Biomed Sci. 2022;29:88.
Cogrossi LL, et al. Microbiome modulation uncouples efficacy and toxicity induced by immune checkpoint blockade in mouse multiple myeloma. Nat Commun. 2025;16:65312.
Furusawa Y, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells. Nature. 2013;504:446–50.
谷禾健康
氨基酸(AA)稳态对人体健康至关重要,其紊乱与多种疾病的发生和进展密切相关,如2型糖尿病和炎症性肠病(IBD),并且常常是治疗结果的决定性因素。
肠道微生物群可能通过多种机制调节宿主氨基酸的可用性,例如影响消化酶(如胰蛋白酶)的活性。肠道微生物群定殖还可能改变肠道通透性,从而影响胃肠道中游离氨基酸的运输和吸收。此外,肠道微生物可能直接利用或代谢肠道中的氨基酸,或合成并向宿主提供氨基酸。以往研究表明,肠道微生物组的变化(或其存在)可能影响肠道氨基酸谱。然而,参与调控宿氨基酸稳态的关键菌株及代谢基因仍未完全明确。
今天分享的这一篇发表在《Cell Host & Microbe》期刊上的研究论文”Microbiota metabolism of intestinal amino acids impacts host nutrient homeostasis and physiology”,通过比较Met无菌(GF)小鼠与无特异病原体(SPF)小鼠的分解物谱已证明,肠道细菌定殖会影响胃肠道(GI)中游离氨基酸谱,还通过高效代谢肠道氨基酸来重塑宿主氨基酸的格局。为确定责任微生物/基因,该研究开发了基于代谢组学的检测法,筛查了104个共生菌,并识别出能高效利用氨基酸的候选基因,并发现这些基因调控了肠道和循环氨基酸的可用性。
结果显示,不同氨基酸具有特定的细菌消费者,消耗效率差异明显。例如,天冬酰胺和谷氨酸被拟杆菌和部分梭菌高效利用,而芳香族氨基酸(色氨酸、酪氨酸)及支链氨基酸(BCAAs)仅为部分厚壁菌门成员所代谢,效率较低。值得注意的是,支链氨基酸与色氨酸代谢相关的微生物基因还能通过调节外周血清素间接影响宿主葡萄糖平衡。
总体而言,该研究首次系统揭示了肠道微生物群编码的氨基酸代谢活动对宿主营养稳态的深远影响,为理解微生物介导的氨基酸利用及其对宿主代谢调控机制提供了关键分子依据。
氨基酸稳态对人类健康至关重要,其紊乱与2型糖尿病和炎症性肠病(IBD)等多种疾病的进展密切相关。虽然传统上认为肠道和肝脏是调控营养代谢的主要器官,但最新研究发现,肠道微生物群通过代谢氨基酸能够深刻重塑宿主的氨基酸谱。
★该研究的核心意义在于:
•揭示了肠道微生物群通过代谢肠道氨基酸影响宿主氨基酸稳态的分子机制;
•鉴定了高效消耗氨基酸的特定肠道微生物及其代谢基因;
•阐明了微生物群氨基酸代谢基因如何通过外周血清素调节宿主葡萄糖稳态;
•为通过调节肠道微生物群代谢活性改善人类健康提供了新的靶点和策略。
▸ 肠道微生物群对宿主氨基酸水平的影响
研究首先通过比较无菌(GF)小鼠、无特定病原体(SPF)小鼠以及接受SPF微生物群移植(FMT)的GF小鼠,证实了肠道微生物群定植显著降低了肠道和循环氨基酸水平。
靶向代谢组学分析显示,SPF小鼠或接受SPF微生物群的GF小鼠肠道和循环氨基酸浓度普遍降低,这与之前的研究结果一致,表明微生物对肠道氨基酸的利用可能是影响宿主氨基酸稳态的主要途径之一。
▸ 高效代谢氨基酸的肠道微生物筛选
为识别高效代谢肠道氨基酸的微生物,研究者建立了一种基于活细胞的高通量代谢组学筛选方法,对104种肠道共生菌进行了系统分析。该方法综合考虑多个因素:
•生长阶段差异:绘制各菌株生长曲线并进行参数拟合,确保在可比生长阶段进行筛选;
•时间动态分析:分别在15、30和60分钟测定氨基酸消耗量,以精确评估不同菌株对特定氨基酸的利用速率;
•营养条件优化:在测定缓冲液中除氨基酸外,补充无机氮源、微量矿物质、维生素及额外碳源(如葡萄糖),以避免因营养限制导致的氨基酸非特异性快速消耗。
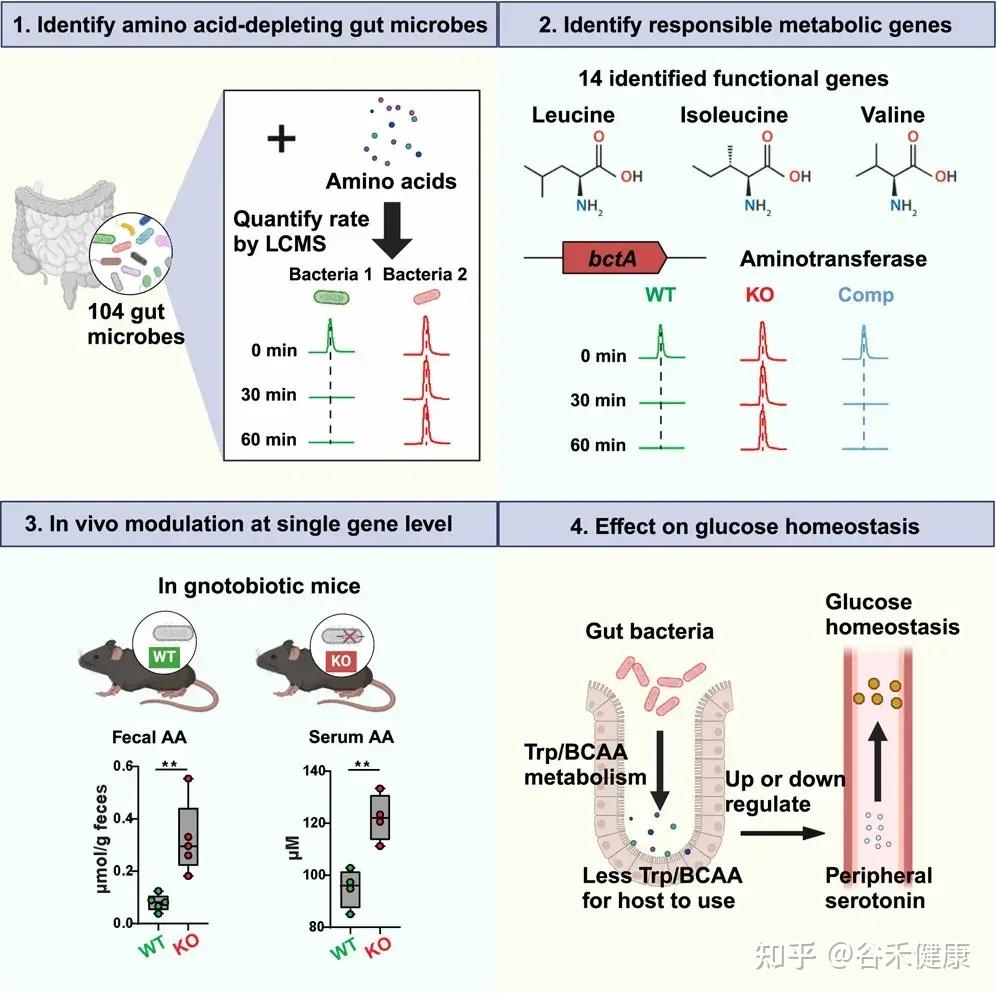
研究流程图展示了从识别消耗氨基酸的肠道微生物、鉴定负责的代谢基因、单基因水平的体内调节到对葡萄糖稳态影响的完整研究路径。
▸ 微生物代谢基因的鉴定与功能验证
研究利用CRISPR-Cas9和ClosTron等基因编辑技术,在系统发育多样的肠道微生物中开展大规模基因缺失分析,以鉴定氨基酸代谢的关键基因。筛选标准包括:
1.代谢基因编码的酶以氨基酸为直接底物;
2.这些基因存在于高效代谢氨基酸的肠道菌株中;
3.携带相关基因的菌株能稳定定植于无菌(GF)小鼠肠道,并降低宿主体内相应氨基酸水平。
通过构建基因敲除和互补菌株并结合代谢组学分析,研究识别出多种氨基酸代谢相关基因,并在单菌定植的GF小鼠模型中验证了其对肠道及血清氨基酸水平的调控作用。
▸ 高效代谢氨基酸的肠道微生物鉴定
通过大规模筛选,研究发现不同肠道微生物对氨基酸的代谢效率和偏好存在显著差异:
鉴定高效利用氨基酸的肠道微生物候选者
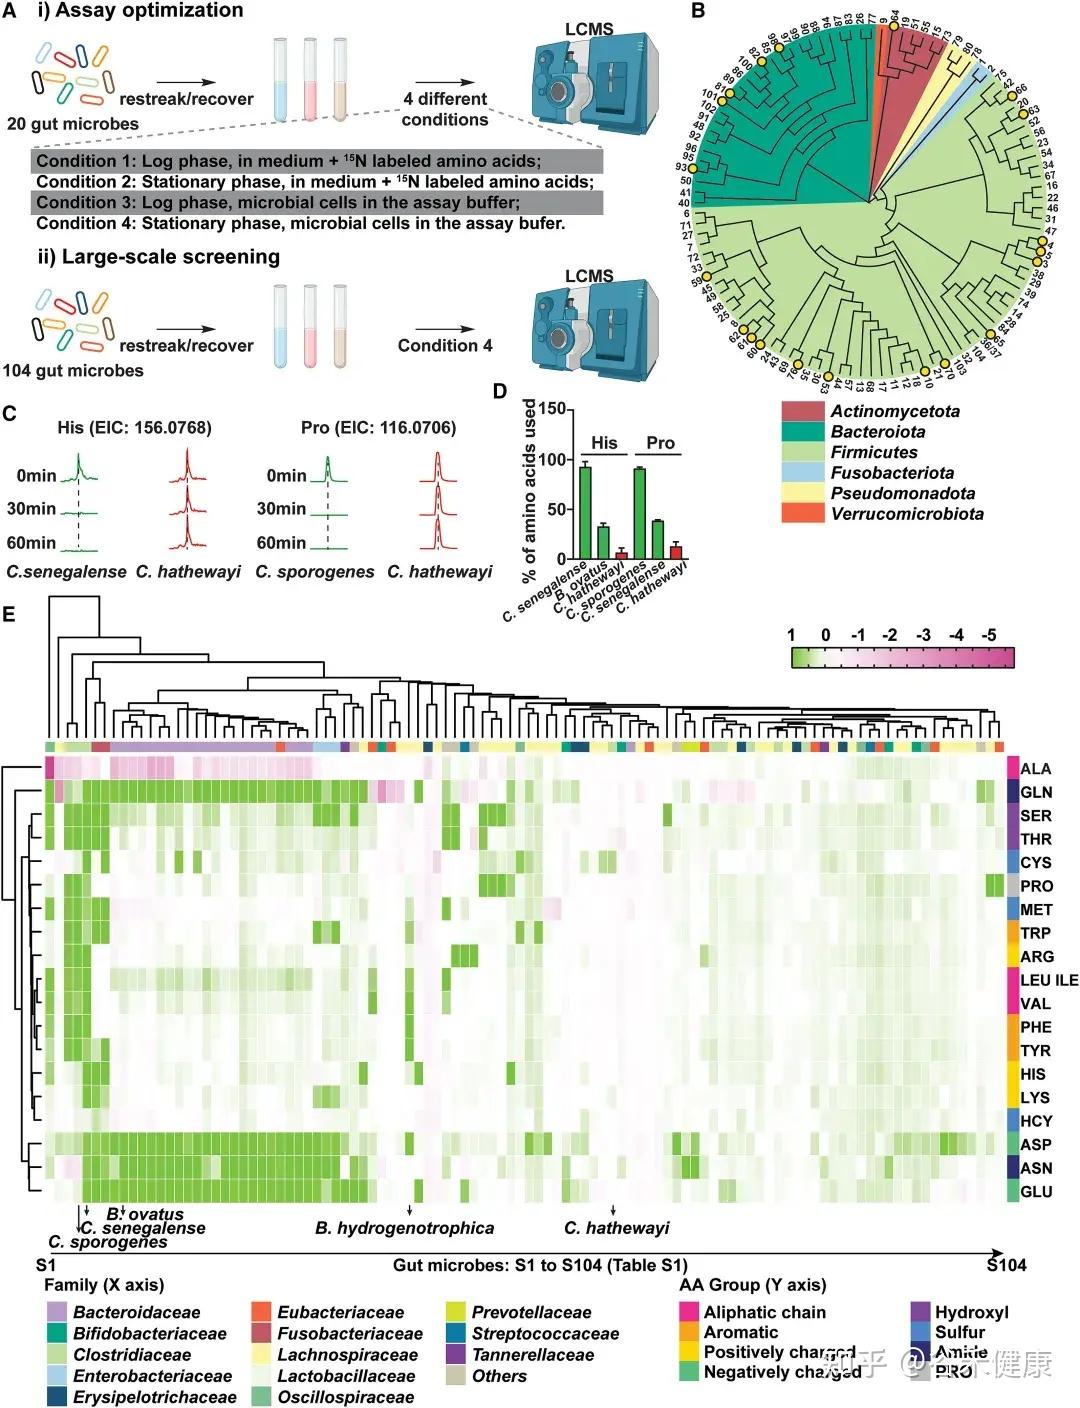
热图展示了104种肠道微生物对不同氨基酸的代谢情况,揭示了微生物系统发育与氨基酸代谢效率之间的复杂关系。
★ 关键发现包括:
•梭菌属微生物:如Clostridium sporogenes ATCC15579和Clostridium senegalense DSM25507,可高效代谢多种氨基酸,包括精氨酸、芳香族氨基酸、支链氨基酸、组氨酸、赖氨酸和脯氨酸等。
•拟杆菌属共生菌:作为肠道多糖的主要利用者,也能有效代谢天冬酰胺(Asn)、天冬氨酸(Asp)和谷氨酰胺(Gln)等氨基酸。
•氨基酸特异性代谢:不同氨基酸具有特定的细菌“消费者”,消耗效率差异明显。天冬酰胺和谷氨酸通常被拟杆菌和部分梭菌快速利用,而芳香族氨基酸(色氨酸、酪氨酸)及BCAA仅被部分厚壁菌门或梭菌较低效地代谢。
▸ 氨基酸代谢相关微生物基因的鉴定
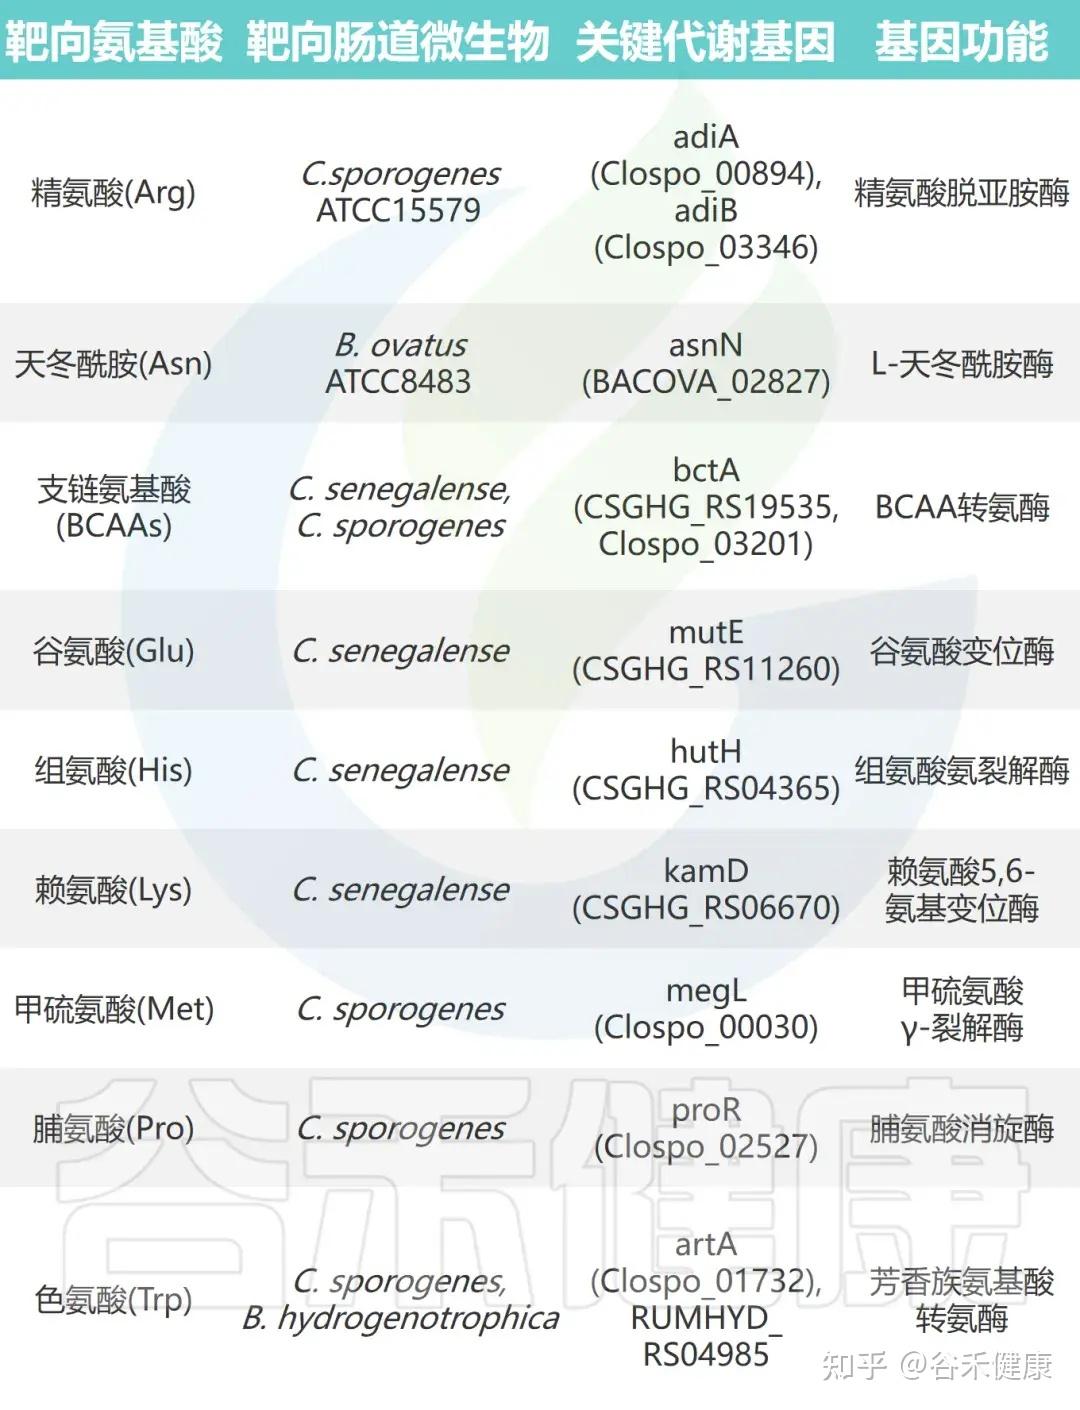
通过对高效代谢氨基酸的肠道微生物进行大规模基因缺失分析,研究鉴定出多种关键氨基酸代谢基因。这些基因编码的酶包括转氨酶、脱羧酶、消旋酶和氨裂解酶等,具有以下特征:
•功能冗余性:单株细菌常含多个具有相似功能的基因。例如,C. sporogenes 携带两种精氨酸脱亚胺酶基因(adiA 和 adiB),单基因敲除影响较小,而双敲除可完全消除其精氨酸代谢能力。
•底物特异性:代谢酶展现高度底物选择性。例如,C. sporogenes 的转氨酶 ArtA 特异作用于色氨酸和酪氨酸,但对苯丙氨酸代谢影响极小。
•催化多样性:不同类型的酶参与多条代谢途径。支链氨基酸和色氨酸经转氨途径代谢,脯氨酸通过还原反应被 C. sporogenes 利用,而谷氨酸、甲硫氨酸、丝氨酸和苏氨酸则由氨裂解酶快速分解。
•功能可转移性:这些酶的催化功能具有可转移性,在其他肠道共生菌中表达其编码基因可赋予相应氨基酸的消耗能力。
▸ 微生物代谢基因调控宿主氨基酸稳态
通过将野生型菌株及其代谢基因缺失突变体分别单菌定植于GF小鼠,研究发现这些基因显著影响宿主肠道及循环系统中的氨基酸水平:
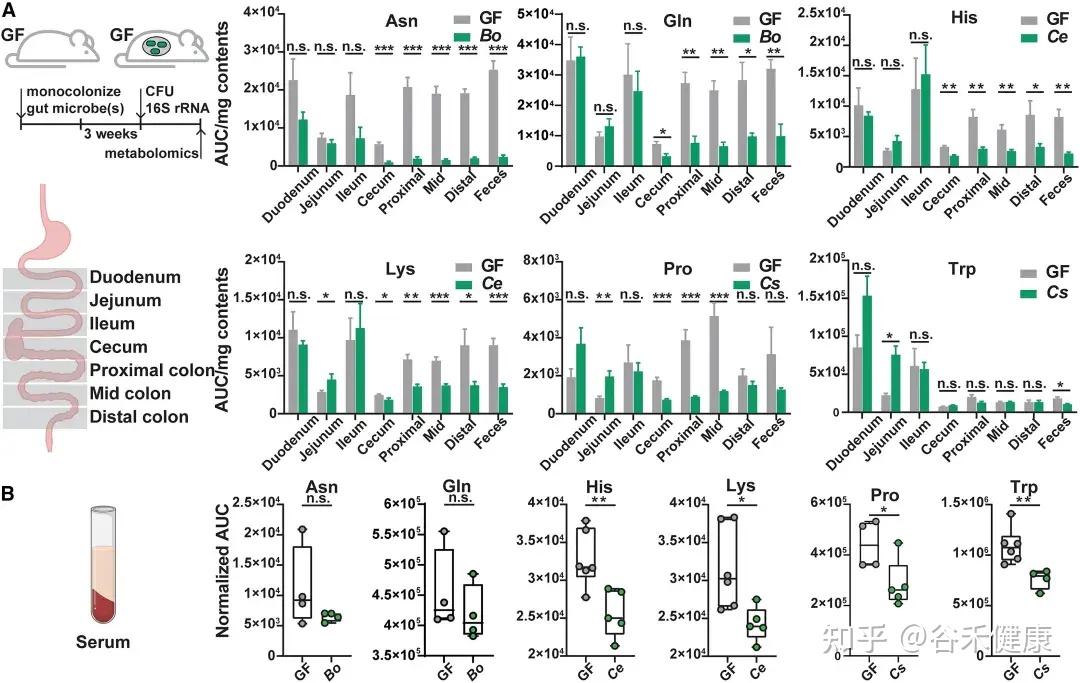
无菌小鼠单一定植B. ovatus、C. senegalense和C.sporogenes野生型菌株后,肠道和血清中特定氨基酸浓度显著降低。
★ 主要发现包括:
•肠道氨基酸稳态调控:多数鉴定出的微生物代谢基因或酶影响肠道氨基酸平衡。由于突变体的相应代谢途径被阻断,肠道内容物和粪便中相关氨基酸显著积累。
•循环氨基酸谱变化:部分代谢基因还影响宿主血清氨基酸水平。定植 Asn、Leu/Ile、Pro 和 His 利用缺陷突变体的无菌小鼠,其血清中对应氨基酸明显升高。
•系统性调节的复杂性:循环氨基酸水平的变化并不总与微生物在肠道中的代谢能力一致。例如,定植 C. sporogenes 精氨酸利用缺陷突变体可显著提高肠道精氨酸水平,但对循环精氨酸影响有限,提示肠上皮或肝脏代谢等额外机制亦参与精氨酸的全身稳态调控。
单基因水平的微生物群氨基酸代谢调控
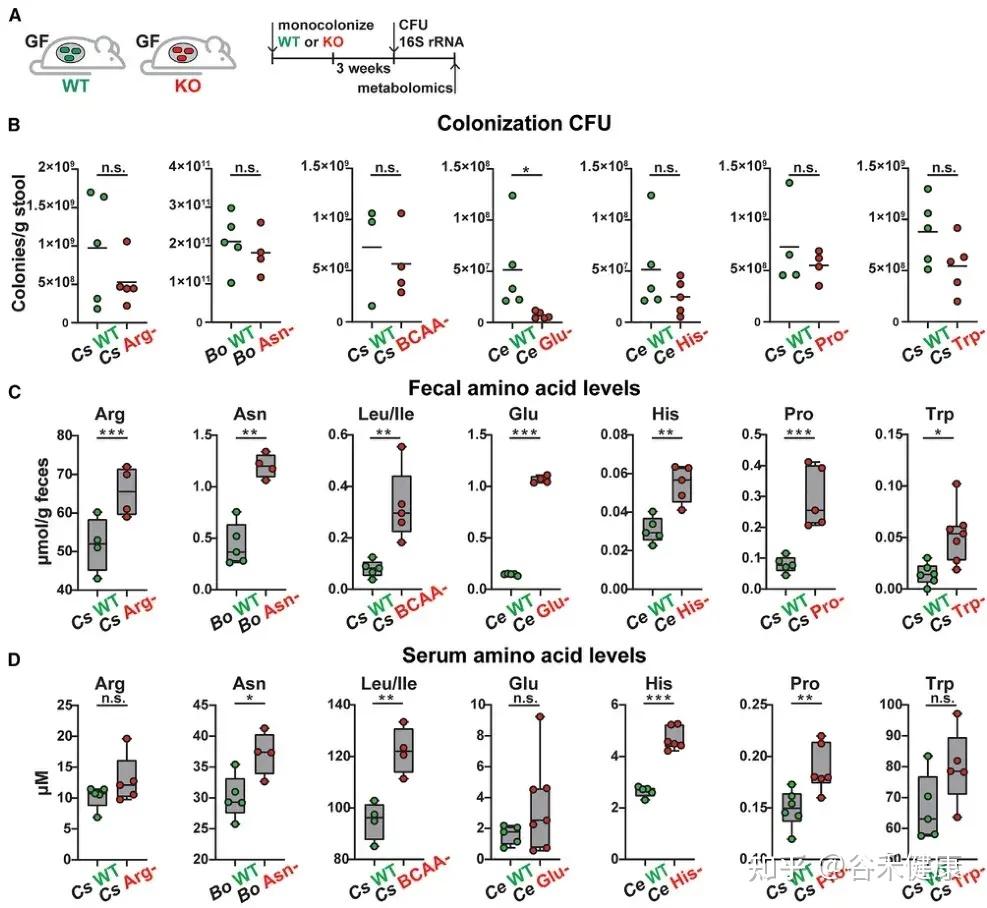
单基因水平的体内调节实验显示,氨基酸代谢基因缺陷突变体定植的无菌小鼠粪便和血清中相应氨基酸水平显著升高。
▸ 微生物氨基酸代谢通过外周血清素调控宿主葡萄糖稳态
研究发现,微生物中支链氨基酸(BCAAs)和色氨酸代谢相关基因可通过外周血清素间接调节宿主葡萄糖稳态。将 C. sporogenes 野生型、BCAA 缺陷型及色氨酸缺陷型突变体分别单菌定植于 GF 小鼠,并进行口服葡萄糖耐量试验(OGTT),结果显示以下关键发现:
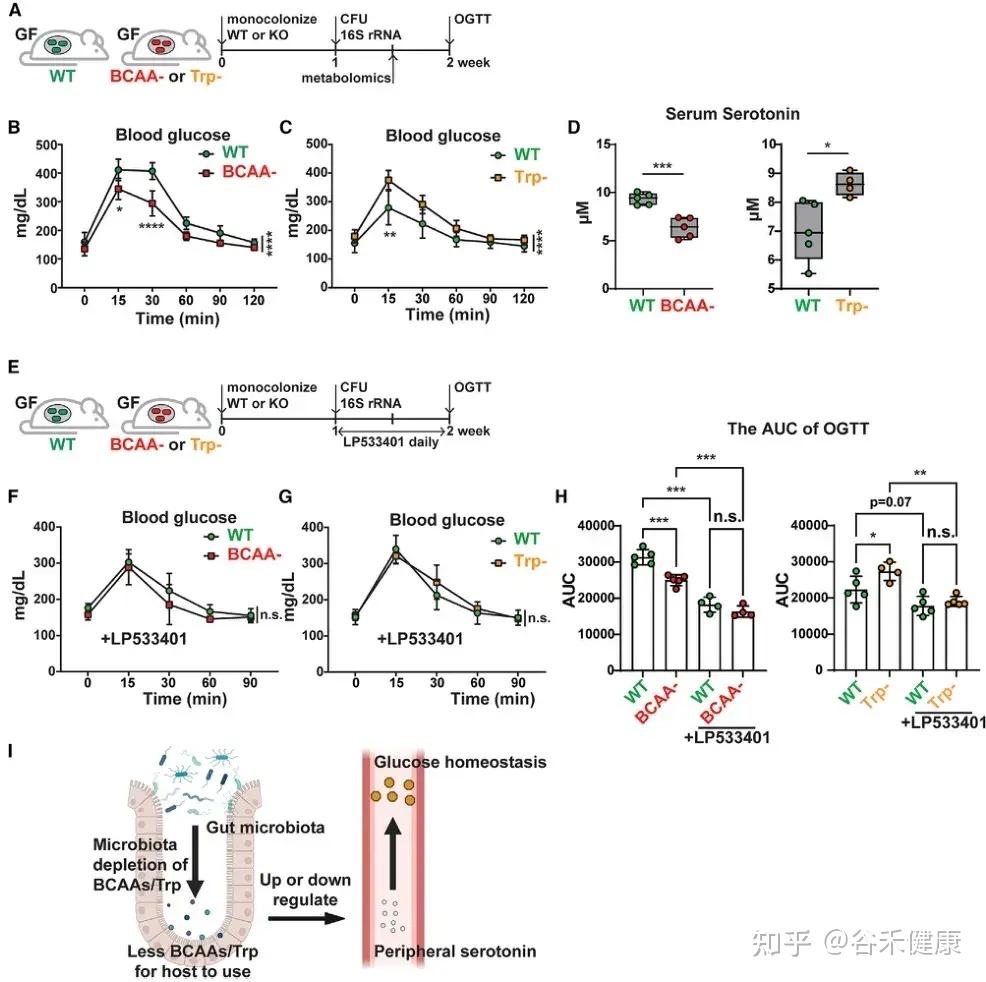
微生物支链氨基酸和色氨酸代谢通过调节外周血清素水平影响宿主葡萄糖稳态的机制示意图及实验验证。
•BCAA代谢与葡萄糖耐受性:定植 BCAA 缺陷突变体的小鼠葡萄糖耐受性显著增强,伴随血清素水平下降。
•色氨酸代谢与葡萄糖耐受性:定植色氨酸代谢缺陷突变体的小鼠表现相反,葡萄糖耐受性下降,血清素水平升高。
•血清素介导机制:应用 Tph1 抑制剂 LP533401 阻断外周血清素合成后,野生型与突变体定植小鼠间的葡萄糖处理差异显著减小,证实微生物氨基酸代谢通过调控外周血清素影响宿主葡萄糖稳态。
这一发现揭示了肠道微生物群、氨基酸代谢、外周血清素及葡萄糖稳态间的复杂关联,为理解代谢性疾病的机制提供了新思路。
!
研究局限性
尽管该研究取得了重要发现,但仍存在一些局限性:
1.微生物氨基酸代谢的多样性:研究主要关注肠道微生物对氨基酸的消耗,而其合成、转运等途径也可能影响宿主氨基酸稳态。体外测定仅反映特定条件下的代谢效率,难以全面代表其在宿主体内的作用。
2.模型简化的局限性:研究采用单菌定植的 GF 小鼠模型,未来应在更接近生理状态的模型(如定植简化微生物群的 GF 小鼠)中验证这些机制。
3.复杂微生物群中基因操作的挑战:虽然本研究成功在宿主定植背景下操纵单一氨基酸代谢途径,但在复杂微生物群中实现精确基因操作仍需进一步技术突破。
4.宿主响应机制研究不足:研究揭示了野生型与突变体共生菌定植小鼠间的生理差异,但尚需深入解析相关宿主细胞类型及信号通路的具体调控机制。
未来的研究在单基因分辨率下揭示了肠道微生物群如何通过代谢肠道氨基酸影响宿主氨基酸稳态。研究鉴定出多种积极代谢肠道氨基酸的细菌,并通过大规模基因缺失分析确定了其关键代谢基因。功能实验显示,这些代谢途径通过直接调控宿主肠道和循环氨基酸的生物利用度,或间接影响外周血清素合成,从而调节宿主的葡萄糖代谢和整体营养稳态。
研究表明,定植微生物群可能以“竞争”模式与宿主共同调控营养平衡,为理解其分子层面的调节机制提供了新视角。更值得关注的是它揭示了一个新的通路:微生物氨基酸利用 → 改变宿主血中氨基酸/代谢产物 → 改变激素/神经递质(如外周 5‑HT)→ 改变葡萄糖代谢等生理功能,所以这些菌在肠道里的存在,更可能是:微调宿主营养和代谢状态,而不是简单的“好/坏”。
参考文献:
Li TT, Chen X, Huo D, Arifuzzaman M, Qiao S, Jin WB, Shi H, Li XV; JRI Live Cell Bank Consortium; Iliev ID, Artis D, Guo CJ. Microbiota metabolism of intestinal amino acids impacts host nutrient homeostasis and physiology. Cell Host Microbe. 2024 May 8;32(5):661-675.e10.
谷禾健康
健康的身体,匀称的身材,充沛的精力,想必是很多人所向往的,有一个物质在其中起到了重要的作用,它就是亮氨酸。
亮氨酸——我们有时会在一些报告和补剂中看见这个名字,那么它究竟是什么?对我们人体又有什么作用?
亮氨酸,又称白氨酸,是支链氨基酸之一(支链氨基酸是人体合成蛋白质的重要物质)。亮氨酸因其促进肌肉生长和提高运动表现的能力而受到运动员的喜爱。不仅如此,它还可以减缓老年人的肌肉退化,并有助于控制血糖。
近年来,亮氨酸引起了相当大的关注,部分原因是它对肌肉合成的促进作用以及对葡萄糖耐量、胰岛素敏感性的有益影响。此外亮氨酸还可以影响体内和体外的脂质和能量代谢,从而有利于减少肥胖。
亮氨酸可以调节线粒体功能障碍,有人认为,通过增加亮氨酸的存在率和活性来增加能量消耗和去除有毒脂质可能是治疗肥胖及其后续疾病(如胰岛素抵抗、糖尿病和心血管疾病)的一种有前景的治疗策略。
亮氨酸与肠道微生物之间也存在着密切的关系。首先,亮氨酸可以作为一种营养物质提供给肠道菌群,促进有益菌的生长和繁殖。其次,亮氨酸会在肠道中被一些细菌代谢为有益的代谢产物,如短链脂肪酸,影响肠道菌群的活性及人体健康。此外,肠道菌群的失衡也会影响亮氨酸的代谢和利用。
本文总结了亮氨酸的生物学功能及其在哺乳动物能量代谢中的作用,特别是促进肌肉生长和脂质分解,并为代谢疾病、肌肉减少症、神经系统疾病的治疗和食品行业及畜牧业的科学应用提供一定参考。
亮氨酸,又称白氨酸,化学名称为α-氨基异己酸,于1819年首次从奶酪中分离出来。后来从肌肉和羊毛的酸水解产物中将其结晶出来,并将其命名为Leu(亮氨酸)。
✦亮氨酸一般分为L-亮氨酸和D-亮氨酸
L-亮氨酸是氨基酸的天然形式,存在于体内的蛋白质中,是用作补充剂的主要形式。
注:人体中的亮氨酸基本都是L-亮氨酸。
D-亮氨酸是L-亮氨酸的镜像,它是在实验室中产生的,也可用作补充剂。一般用于工业。
★ 亮氨酸在代谢中起重要作用
亮氨酸具有很强的氧化能力,其主要生理功能包括调节蛋白质代谢和氧化能量的供应。这种能量供应可用于特殊生理时期,如饥饿、哺乳和运动,以及调节免疫功能和脂质代谢。
亮氨酸也可以直接分解成乙酰辅酶A,使其成为体内最重要的生酮氨基酸之一。(在葡萄糖不能供能的情况下动用脂肪产生酮体),可以通过提高血液胰岛素水平直接或间接促进蛋白质的合成,并且可以抑制骨骼肌蛋白质的分解。
注意:亮氨酸通常被认为比其他支链氨基酸更可取,因为它分解和吸收更快,使其比其他类型的氨基酸更容易使用。
★ 亮氨酸是一种必需氨基酸,但广泛存在于食物中
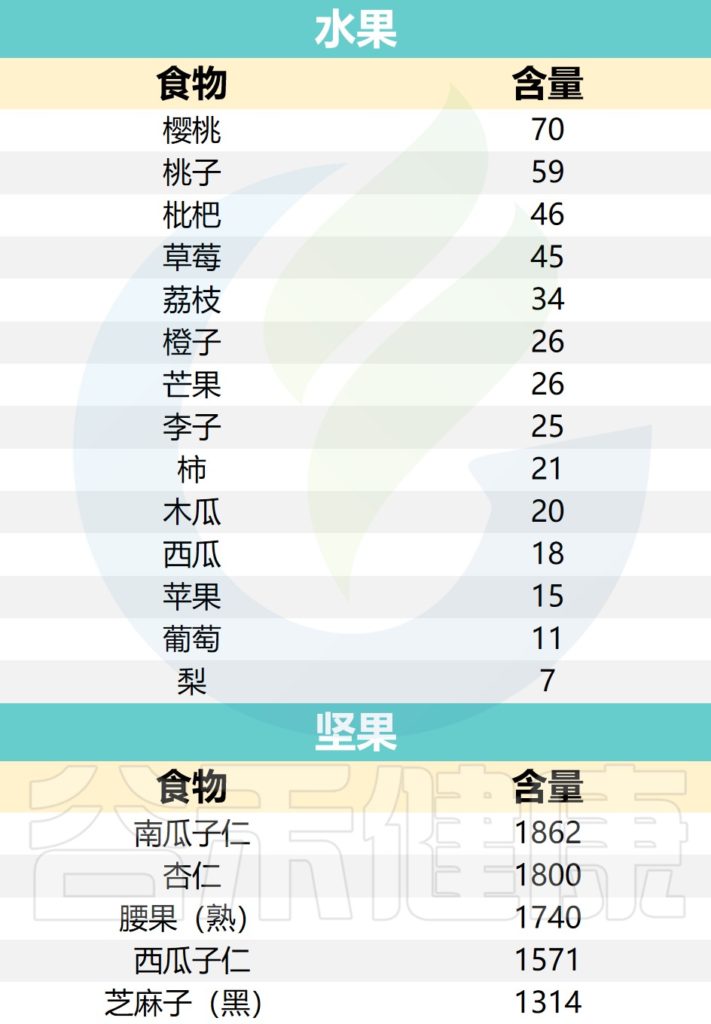
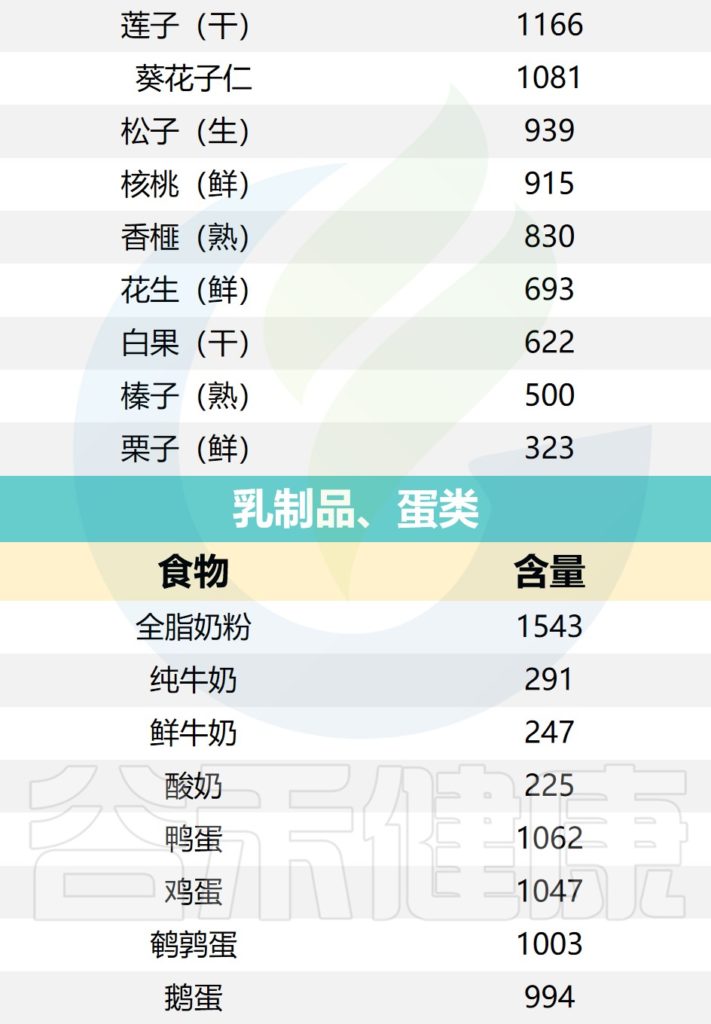
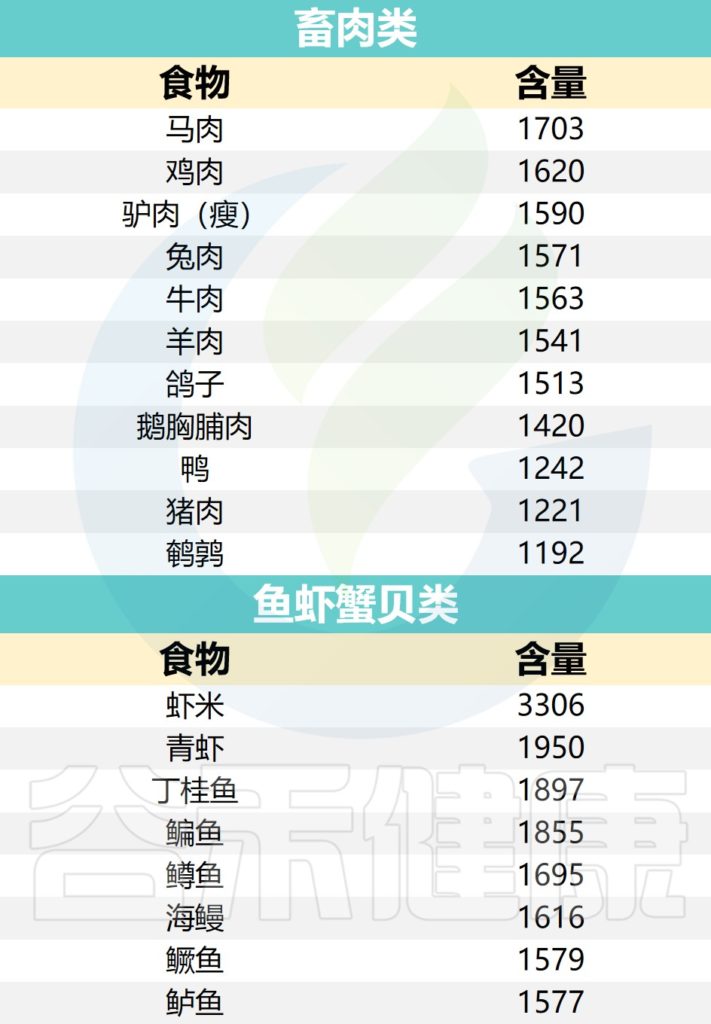
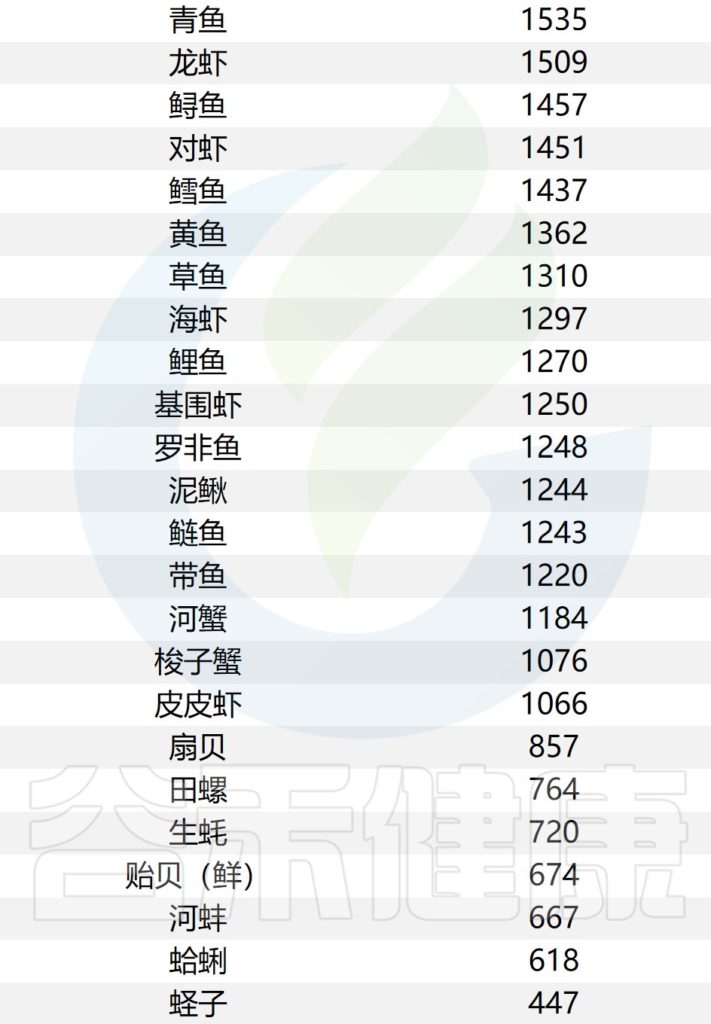
作为一种必需氨基酸和支链氨基酸,亮氨酸广泛存在于动物蛋白(牛肉、马肉、虾米)和乳制品(全脂奶粉)以及豆类中。一些坚果如杏仁和腰果中的含量也较高。
必需氨基酸——人体所必需的氨基酸,同时人体自身不能合成,或合成速度远不足以满足人体的需要,从而必需由食物提供的氨基酸。
支链氨基酸——指具有支链侧链结构的氨基酸,支链氨基酸是蛋白质中三种常见的氨基酸,另两种支链氨基酸是缬氨酸和异亮氨酸。
亮氨酸是一种氨基酸,它在人体中具有多种重要功能。当亮氨酸偏低或偏高时,可能都会对身体产生一些不良影响。
↓↓ 亮氨酸偏低的后果:
蛋白质合成受阻
亮氨酸是蛋白质合成的重要组成部分,如果亮氨酸偏低,可能会影响身体内蛋白质的合成,导致肌肉组织的损失和功能受损。
免疫功能下降
亮氨酸对免疫系统的正常功能至关重要。亮氨酸偏低可能会导致免疫功能下降,增加感染的风险。
能量供应不足
亮氨酸在体内可以被转化为能量,供给身体使用。亮氨酸偏低可能导致能量供应不足,影响身体的正常代谢和功能。
引起疲劳、头痛
膳食摄入亮氨酸不足导致身体缺乏时,还会引起一系列症状,如疲劳和头痛等。有些情况下,还会导致晕眩和易怒。
▸ 容易亮氨酸偏低的人群
营养不良:饮食中缺乏蛋白质或亮氨酸含量不足,可能导致亮氨酸水平下降。
肝脏疾病:肝脏是合成蛋白质的重要器官,如果肝脏功能受损,可能会影响蛋白质合成和亮氨酸的产生。
消化系统问题:某些肠道疾病或吸收问题可能会影响亮氨酸的吸收和利用。
慢性疾病:某些慢性疾病,如肾脏疾病或肠道疾病,可能会导致亮氨酸水平下降。
其他因素:某些药物、代谢异常或遗传性疾病也可能导致亮氨酸水平降低。
↑↑ 亮氨酸偏高的后果:
氨基酸失衡
亮氨酸偏高可能导致其他氨基酸的相对不足,破坏氨基酸的平衡,影响蛋白质合成和身体的正常功能。
氮代谢紊乱
亮氨酸偏高会导致氮代谢紊乱,增加肾脏的负担,对肾功能产生不良影响。
毒性效应
亮氨酸在高浓度下可能对神经系统产生毒性效应,引起神经系统的损伤。引起谵妄和神经损害,并可危及生命。
引发一些疾病
亮氨酸浓度过高会引起亮氨酸血瘀、痛风、枫糖尿病等疾病。
▸ 容易亮氨酸偏高的人群
•遗传性疾病:某些遗传性疾病会导致亮氨酸的代谢异常,这些疾病通常是由于亮氨酸代谢酶的缺陷引起的。例如枫糖尿病或遗传性亮氨酸血症。
•肝脏疾病:肝脏是身体中重要的代谢器官,如果肝脏功能受损,可能会导致亮氨酸等物质在体内积累过多。
•营养补充过量:过量摄入亮氨酸的营养补充剂或蛋白质粉末可能会导致亮氨酸水平升高。
因此,在使用任何营养补充剂之前,最好咨询医生或专业营养师的建议。
亮氨酸的偏高或偏低通常是由于饮食不平衡、基因突变、代谢紊乱等原因引起的。值得注意的是,亮氨酸的需求量会因个体差异和特定状况而有所不同。例如,运动员和肌肉量较大的人可能需要更多的亮氨酸来支持肌肉生长和修复。谷禾的健康检测报告中也能评估体内亮氨酸的含量,并给出个性化的建议。
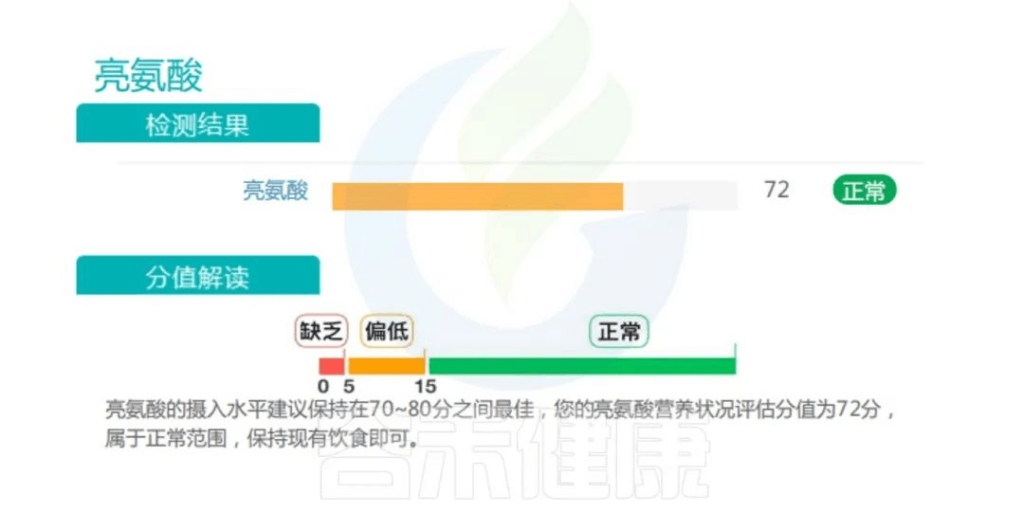
前面讲述了许多亮氨酸的重要性,那么在日常生活中我们应该如何补充它呢?亮氨酸作为必需氨基酸和支链氨基酸,通常被认为比其他支链氨基酸更可取,因为它的分解和吸收速度更快,比其他类型(如异亮氨酸和缬氨酸)更容易使用。
亮氨酸也可以直接分解成乙酰辅酶A,使其成为体内最重要的生酮氨基酸之一。虽然大多数其他氨基酸被转化为葡萄糖,但由亮氨酸形成的乙酰辅酶A可用于制造酮体。
运动与亮氨酸的摄入
✦ 运动后亮氨酸摄入的持续时间和效果
运动后的合成窗口是运动后身体特别容易吸收营养的时期,持续30分钟到两小时。在这个时间内摄取亮氨酸可以增加肌肉蛋白质合成率20-30%,具体取决于个体差异和运动的具体情况。
✦ 运动前摄入亮氨酸的潜在副作用
运动前摄入亮氨酸有其缺点。由此产生的胰岛素激增可能会导致运动中的血糖水平下降,导致头晕甚至昏厥。
此外,运动前的高亮氨酸水平可能会重新引导血流到消化系统,减少流向正在使用的肌肉的血流。
不同来源的亮氨酸含量
✦ 不同蛋白质来源,亮氨酸含量不同
你应该吃什么来获得足够的蛋白质和亮氨酸?这取决于你选择的蛋白质来源。亮氨酸作为必需氨基酸,只能从食物或补充剂中获得。
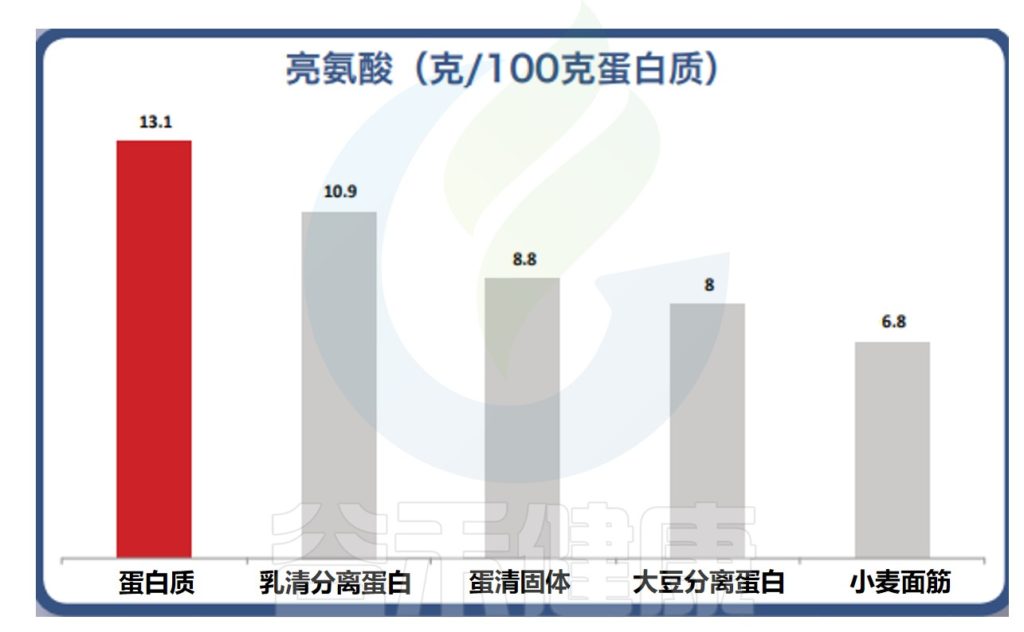
✦动物性蛋白的亮氨酸含量更高
植物性蛋白缺乏一种或多种必需氨基酸,对肌肉蛋白合成的刺激效果较差,而乳制品和动物源蛋白具有较高的亮氨酸百分比。
最近的一项研究,受试者每天摄入19克分离乳清蛋白或26克分离大豆蛋白——两者都提供大约1.8克亮氨酸。
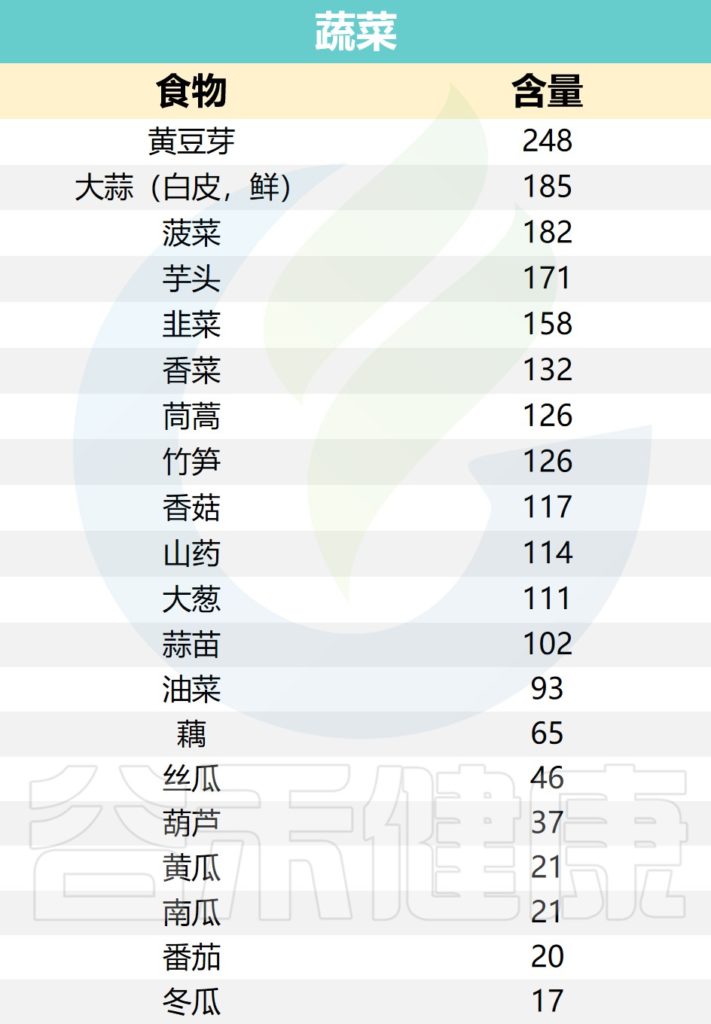
谷禾在此整理了一些常见食物中的亮氨酸含量表,以供大家参考(mg/100g可食用部分)
★ 摄入建议
世界卫生组织建议成年人每天至少需要补充39mg/kg亮氨酸,每餐建议摄入1-3g亮氨酸。婴儿、发育期的青少年以及运动员可以根据需求适量多补充一些亮氨酸。一般来说正常饮食的人亮氨酸不会缺乏。
需要注意的是,最近有研究指出,老年人群亮氨酸推荐量应该更高,因为与年轻人相比,老年人的亮氨酸代谢存在差异:老年人内脏中亮氨酸的滞留量是年轻人的两倍,并且亮氨酸对肌肉蛋白质合成能力的刺激作用随着年龄的增长而降低。
✦ 禁忌
补充亮氨酸会降低血糖水平,从而导致患有以下疾病的人血糖水平不健康:
•低血糖症(低血糖人群)
•糖尿病,服用降血糖药物的患者
关于亮氨酸的拓展知识和认知
亮氨酸的分解代谢是生理衰老的保守调节因子,参与多种生理和病理过程。
•亮氨酸的分解代谢过程
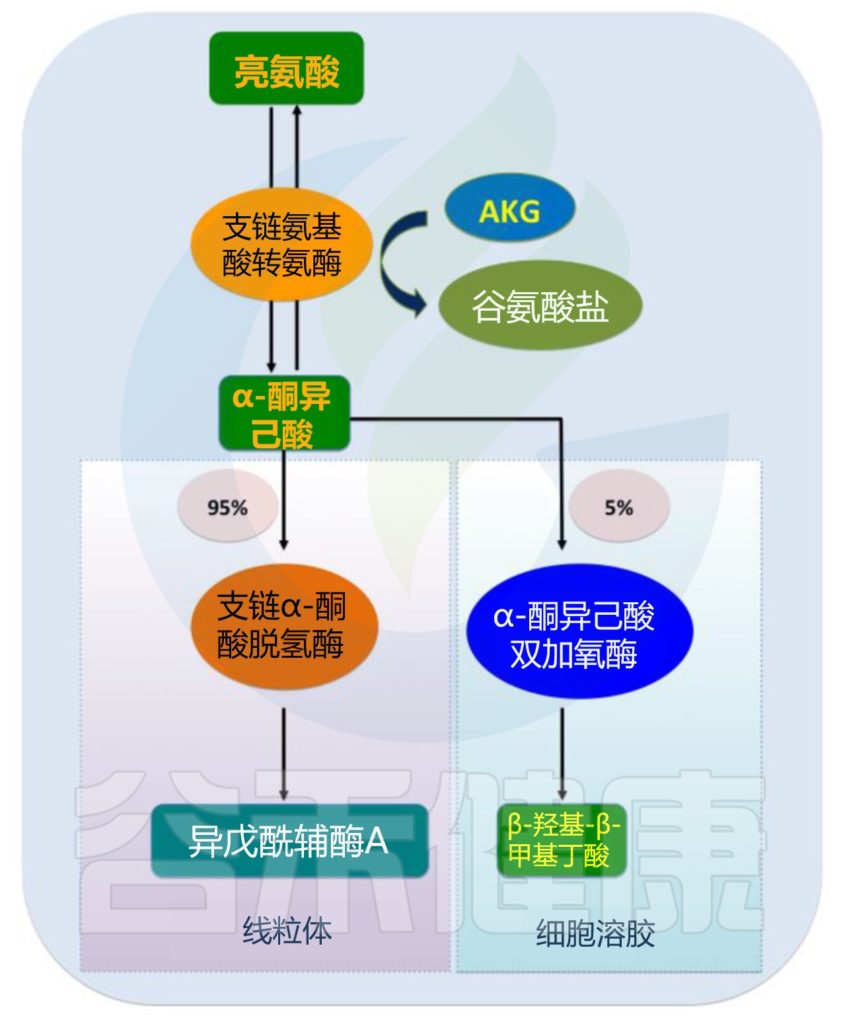
哺乳动物中亮氨酸的分解很复杂,涉及两个过程。最初,摄入的亮氨酸被支链氨基酸转移酶(BCAT)催化生成α-酮异己酸(KIC)和β-羟基-β-甲基丁酸(HMB)的前体;这种转氨作用是快速且双向的。
随后,KIC进入两种代谢途径之一,产生异戊酰辅酶A(占亮氨酸代谢的90-95%)或HMB(占亮氨酸代谢的5-10%)。
后者中,α-酮异己酸通过α-酮异己酸双加氧酶不可逆地代谢为HMB;前者中,α-酮异己酸通过支链α-酮酸脱氢酶(BCKD)催化的一系列反应,发生不可逆且限速的氧化脱羧。
最终,亮氨酸转化为乙酰乙酸和乙酰辅酶A,这是三羧酸循环的中间体。过量的α-酮异己酸可以被释放到循环中,并被肝脏和脂肪组织等其他器官吸收,然后在那里被重新合成为支链氨基酸或氧化生成腺苷三磷酸(ATP)。
Zhang L,et al.Nutrients.2020
★ 亮氨酸的代谢物可以影响能量稳态调节
亮氨酸及其代谢产物被假设为能量稳态的调节信号。研究表明,亮氨酸代谢产物而不是亮氨酸本身可能是mTOR激活的信号。
mTOR——哺乳动物雷帕霉素靶蛋白,是细胞生长和增殖的重要调节因子。
除了亮氨酸,β-羟基-β-甲基丁酸和α-酮异己酸是沉默信息转录调节因子1(SIRT1)酶的直接激活剂。很明显,亮氨酸在将能量从脂肪组织分配到骨骼肌方面发挥着关键作用,导致脂肪细胞中的能量储存减少,肌肉中脂肪酸的利用增加。
亮氨酸的代谢物对能量调节的作用
这里介绍两种:
α-酮异己酸(KIC)、β-羟基-β-甲基丁酸(HMB)
α-酮异己酸(KIC)
充分考虑现有文献表明,KIC在激活mTOR信号传导和SIRT1方面比亮氨酸更有效。KIC和亮氨酸均抑制脂肪细胞中的脂质合成代谢,同时促进脂肪酸氧化 (FAO)。
此外,KIC处理增加了培养的C2C12肌管中支链氨基酸的氧化。KIC通过抑制BCKD激酶增加骨骼肌中的完整脂肪酸氧化,导致BCKD复合物的强烈激活和通过支链氨基酸氧化途径的流量增加。
游离脂肪酸氧化的增加会降低葡萄糖的利用率,而增加肌肉质量可以有效增强脂肪的氧化。然而,值得注意的是,KIC可能是一把双刃剑,在促进生长的同时,通过下调腺苷5′-单磷酸激活蛋白激酶 (AMPK) 的磷酸化来增加脂肪酸合成,从而导致负面影响脂肪组织中脂质代谢。
β-羟基-β-甲基丁酸(HMB)
体外和体内证据表明,亮氨酸向HMB(β-羟基-β-甲基丁酸) 的内源转化效率约为5-10%。尽管如此,HMB作为膳食补充剂的影响一直是近期脂质代谢研究的焦点。
HMB是一种有趣的运动补充剂。在人体试验中,耐力训练中摄入HMB对减少脂肪量具有有利作用。由于运动员试图维持一定的体重(主要是通过降低脂肪组织的量),因此HMB供应可能是他们的合适选择,可以对他们的身体表现产生积极影响。
在一项特别有趣的研究中,饮食诱导的肥胖小鼠接受低剂量(2g/kg饮食)或高剂量(10g/kg饮食)HMB治疗6周,导致脂肪SIRT1活性增加,肌肉葡萄糖摄取增加和棕榈酸酯的摄取、胰岛素敏感性以及炎症应激生物标志物的改善和肥胖的减少。
膳食中补充HMB可以调节脂肪组织功能,包括脂肪酸和脂肪分解,同时增加血清脂联素浓度。这些效应可能部分由AMPKα–mTOR通路介导,并与线粒体生物合成、AMPK–SIRT1–增殖物激活受体γ共激活因子-1α (PGC-1α) 轴和肌因子相关。
值得注意的是,HMB在调节线粒体功能方面也发挥着关键作用,线粒体功能与许多疾病有关,如衰老、神经退行性疾病、肥胖、糖尿病和心血管疾病。
用一定剂量的HMB(50mM) 处理肌管24小时显著增加线粒体质量、呼吸能力和生物发生,并且优于用亮氨酸处理观察到的效果。
综上所述,这些结果表明β-羟基-β-甲基丁酸(HMB)可能通过脂肪组织中的AMPKα-SIRT1-PGC-1α轴调节线粒体生物合成和脂肪酸氧化。
亮氨酸可降低脂肪酸转运与合成相关蛋白的活性,抑制脂肪酸的合成。可调控相关信号因子的表达和刺激胰高血糖素样肽的分泌,从而促进脂肪分解。
•亮氨酸利于脂肪分解,并减少肥胖
据报道,亮氨酸可以抑制脂肪生成,促进脂肪分解和脂肪酸合成,并通过mTOR信号通路显著增加脂肪细胞中的瘦素分泌,有利于减少肥胖。
在脂肪细胞分化过程中增加亮氨酸会降低脂滴周围的脂滴涂层蛋白水平,提高激素敏感脂肪酶的磷酸化水平,并促进脂肪分解。
•亮氨酸可以降低糖尿病风险
膳食亮氨酸可降低高脂肪饮食引起的高血糖和高胆固醇,降低体内脂肪和脂肪产生率,并增加胰岛素敏感性。
研究发现补充亮氨酸可明显改善糖耐量,并呈良好的剂量-效应关系。同时,亮氨酸可以抑制摄入淀粉后的血糖上升,能有效抑制餐后血糖的升高,其机制与促进胃肠道激素胰高血糖素样肽-1(GLP-1)密切相关。
GLP-1具有调节胰岛素释放和糖代谢的作用。当补充亮氨酸后,大量葡萄糖以糖原形式贮存在肝脏和肌肉中,有效降低血中葡萄糖浓度。对治疗头晕有作用。1型和2型糖尿病患者都可以从富含亮氨酸的饮食获得好处,这可以尽量减少碳水化合物摄入。
•亮氨酸可以降低心血管疾病风险
此外,研究人员还总结说,人类饮食中的亮氨酸代谢物会导致甘油三酯和低密度脂蛋白胆固醇降低,从而改善心血管功能。
在运动员中,补充β-羟基-β-甲基丁酸(HMB)进行4周的阻力训练可显著降低心血管危险因素,如低密度脂蛋白或总胆固醇和甘油三酯。
最近,一些研究人员强调,亮氨酸氧化可能是mTOR激活所必需的,mTOR是一种胞质丝氨酸/苏氨酸蛋白激酶,似乎介导脂肪酸氧化,因此亮氨酸可能通过KIC或HMB调节脂肪组织的代谢,充当营养物质传感器。
脂肪组织的脂肪酸氧化能量供应主要用于肌肉组织中蛋白质的周转,这也是亮氨酸减少脂肪沉积、减轻体重的原因之一,但这些现象背后的确切机制还需要进一步研究。
膳食亮氨酸对脂肪组织脂质代谢的影响
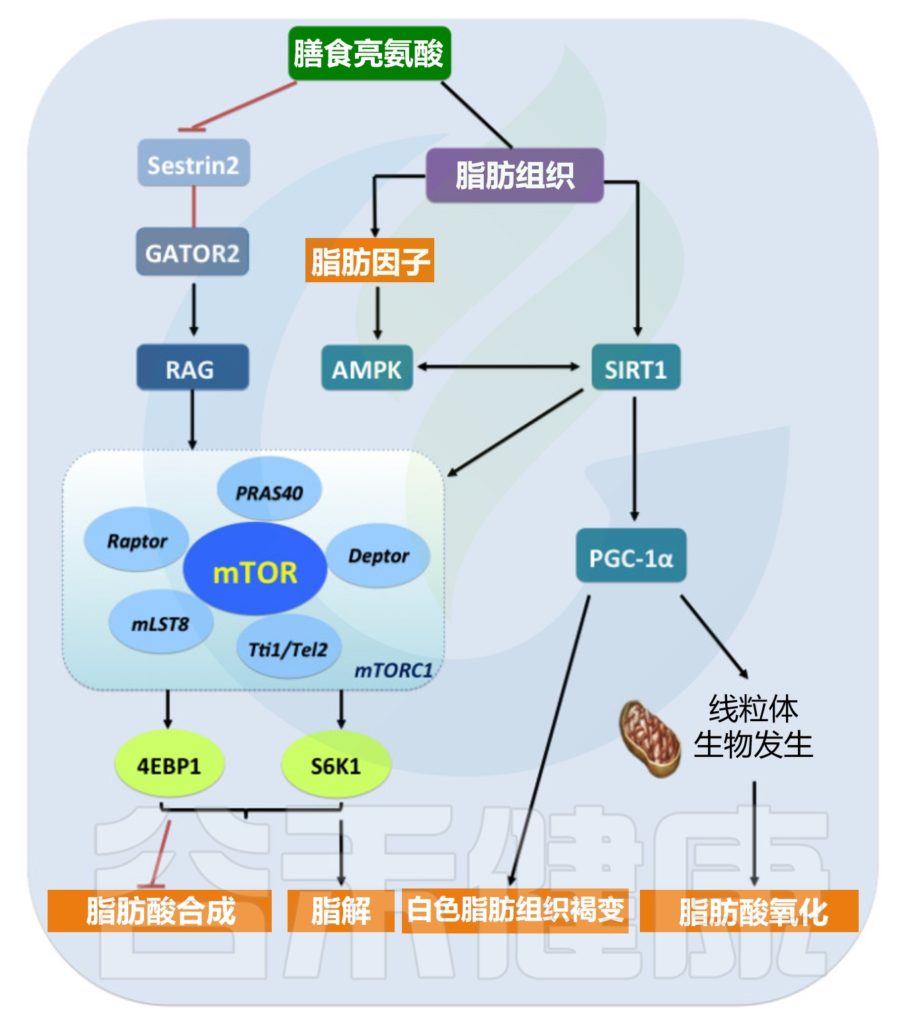
Zhang L,et al.Nutrients.2020
亮氨酸可能通过SIRT1-AMPK-PGC-1α轴促进白色脂肪组织 (WAT) 中的褐变和线粒体生物合成。
•亮氨酸通过促进脂肪组织褐变改善代谢健康
脂肪组织通过白色脂肪细胞的能量储存和褐色脂肪细胞的能量消耗在调节全身能量代谢中发挥重要作用。事实上,过量白色脂肪组织的积累会对代谢健康产生有害影响,而褐色脂肪组织的激活有助于平衡血糖水平并增加能量消耗,从而对肥胖、胰岛素抵抗和高脂血症产生有益影响。
已知亮氨酸对于褐色脂肪细胞分化是必不可少的。因此,在刺激白色脂肪组织中白色脂肪细胞的发育时,“褐变”可能会减少白色脂肪组织的不利影响,并可能有助于改善代谢健康。
•亮氨酸可以通过肠道微生物影响脂肪组织
最近,肠道微生物群已被证明可以调节白色脂肪组织的褐变和褐色脂肪组织的活性;该活性可以由亮氨酸调节。亮氨酸补充已被证明可诱导白色脂肪组织中解偶联蛋白1(UCP-1)(一种棕色脂肪特异性基因)的mRNA表达增加近四倍。
越来越多的证据表明线粒体可能在调节脂肪细胞脂质代谢中发挥关键作用。具体而言,线粒体是底物氧化和ATP生成所必需的,ATP为细胞功能提供能量。此外,脂肪组织中核因子‑红细胞2相关因子2过表达诱导的线粒体丰度增加,增加了脂联素的合成,并已被证明能刺激脂肪酸氧化。
注:核因子‑红细胞2相关因子2是细胞内调节抗炎、抗凋亡和抗氧化基因表达的重要分子。
•亮氨酸调节脂肪细胞的信号通路比其他氨基酸更有效
在脂肪组织中,mTOR通路似乎在前脂肪细胞的分化、脂肪组织形态发生、肥大生长和瘦素分泌中发挥重要作用。新鲜分离的脂肪细胞含有一个亮氨酸刺激的识别位点,该位点与mTOR信号传导耦合,并调节哺乳动物生理学其他方面的脂质代谢,包括饱腹感、胰岛素分泌和线粒体生物发生。
这种活性在很大程度上是由于mTORC1蛋白激酶(一种主要生长控制器)的激活,它由亮氨酸传感器Sestrin2调节,一种抑制mTORC1信号传导的相互作用蛋白。事实上,亮氨酸在体外和体内均可调节脂肪细胞中的mTOR信号通路,并且比其他氨基酸更有效。
•亮氨酸促进线粒体生物合成从而调节脂质代谢
此外,mTOR通过以不依赖于蛋白激酶B的方式控制线粒体的氧化功能来平衡能量代谢。BCAT激活mTOR 信号通路,促进线粒体生物发生和ATP产生,并通过调节相关基因的表达来防御氧化应激。也就是说,亮氨酸促进线粒体生物合成,从而调节脂质代谢。
线粒体参与亮氨酸调节的能量代谢
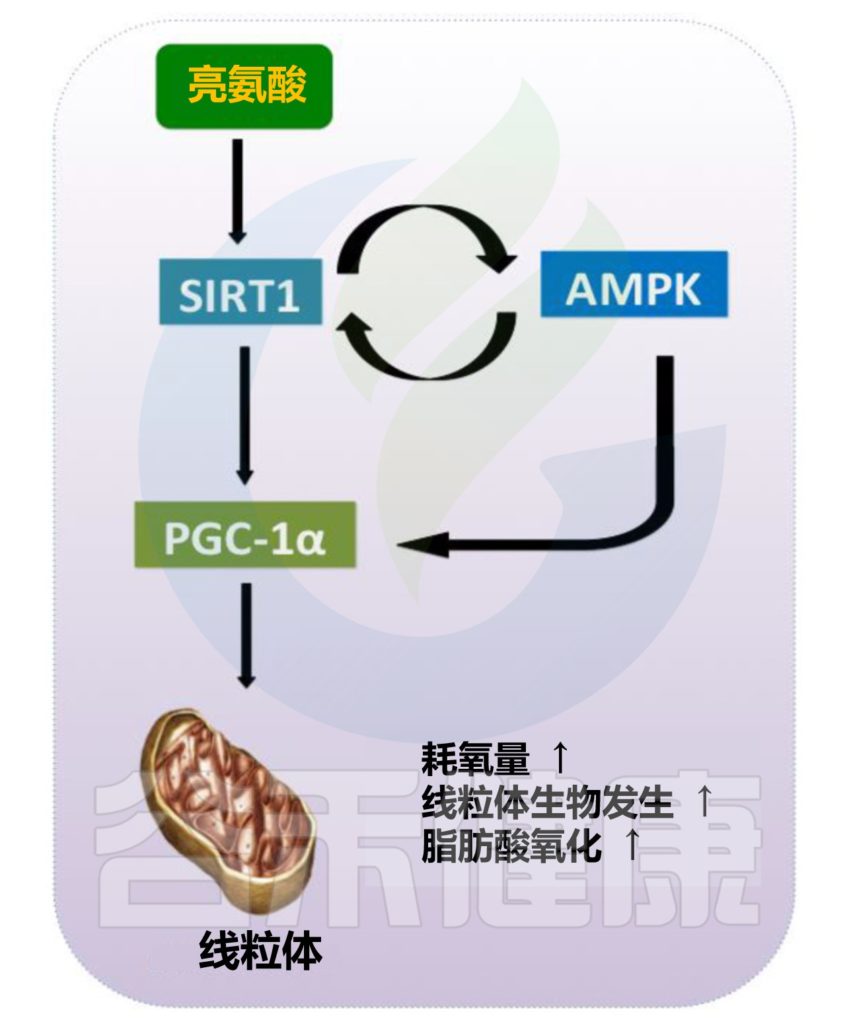
Zhang L,et al.Nutrients.2020
亮氨酸能够刺激脂肪细胞中雷帕霉素敏感的4EBP1磷酸化。简而言之,亮氨酸通过调节mTOR信号传导,调节脂肪细胞组织成组织样结构,并从脂肪组织合成/分泌瘦素。
综上所述,亮氨酸通过调节SIRT1和mTOR信号通路在稳定能量和代谢方面发挥重要作用,从而促进线粒体生物发生并调节脂质代谢。
骨骼肌是利用葡萄糖和脂肪酸的主要部位,也是导致肥胖和2型糖尿病中胰岛素抵抗的主要组织之一。骨骼肌通过清除血清游离脂肪酸、全身脂肪酸和脂质利用在能量稳态中发挥着至关重要的作用。
人体用氨基酸来制造肌肉。这个过程被称为肌肉蛋白合成(MPS),对于修复由运动、受伤和衰老引起的身体压力造成的肌肉纤维至关重要。
亮氨酸是蛋白质合成过程中的必需氨基酸之一,但在特殊生理时期(饥饿、泌乳、应激和运动等)能作为能量来源。
由于蛋白质合成和蛋白质降解不断发生,肌肉蛋白质处于持续更新状态。“合成代谢状态”是指肌肉蛋白质的净增加。相反,“分解代谢状态”是指肌肉蛋白的净损失。
肌肉蛋白由二十种氨基酸组成,所有这些氨基酸都是合成新肌肉蛋白所必需的。其中九种氨基酸必须通过膳食蛋白质来源获得。支链氨基酸是九种必需氨基酸中的三种,对于肌肉蛋白质代谢非常重要。特别是亮氨酸被认为是蛋白质代谢的重要介质。
骨骼肌中支链氨基酸的分解代谢
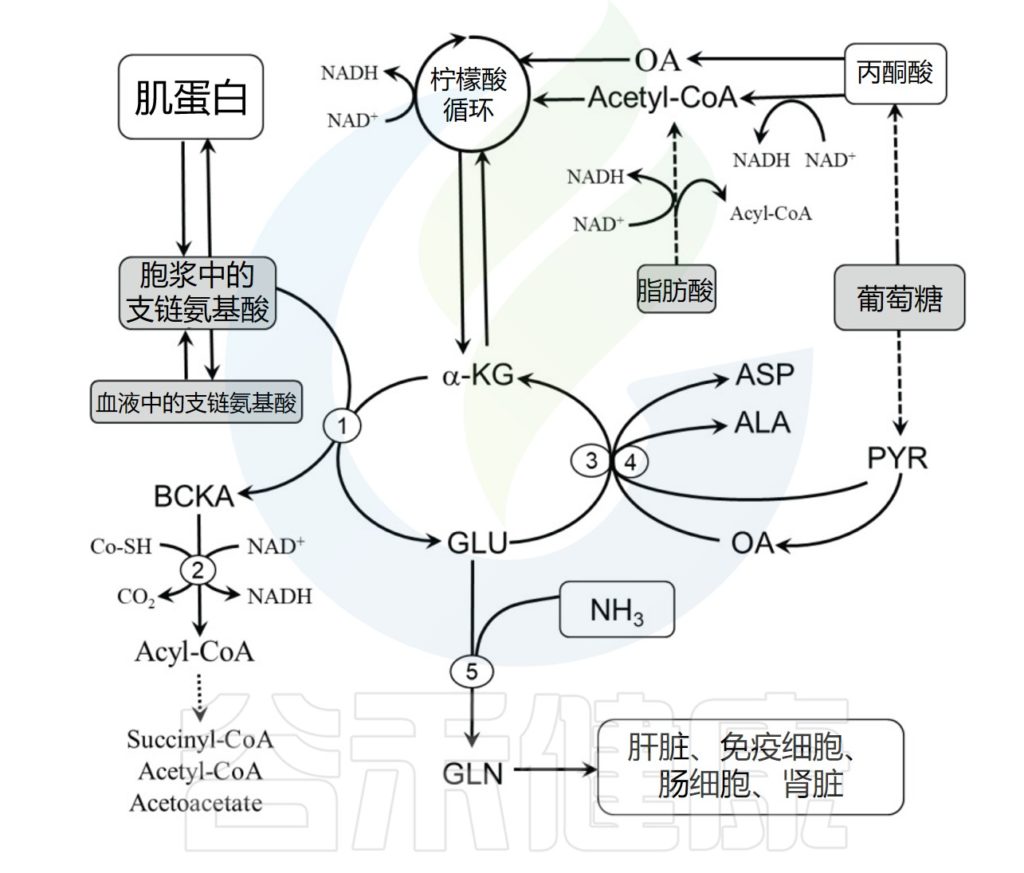
Holeček M.Physiol Res.2021
•亮氨酸通过刺激肌肉蛋白合成来提高运动表现
亮氨酸是唯一能够通过刺激肌肉蛋白合成来提高运动表现的。研究发现,亮氨酸向胰岛素发出信号,最终导致促进蛋白质合成和防止肌肉分解的途径得到更大的激活。
研究发现,年轻人和老年人群的急性亮氨酸补充可以增加肌肉蛋白质的合成。
•运动员应该补充足够的亮氨酸
研究还认为,更多的亮氨酸摄入可以降低体脂。这意味着运动员应该补充足够的蛋白,其中含有高亮氨酸含量,以优化肌肉蛋白合成。
亮氦酸是骨骼肌与心肌唯一可调节蛋白质周转的氨基酸,可以调节机体内氮的利用,进而促进机体蛋白质的合成,促进胰岛素的分泌,抑制胰高血糖素分泌,从而抑制糖原异生,减缓肌肉蛋白的分解。
亮氨酸增加蛋白质合成高达50%,抑制分解为25%。亮氨酸抑制分解主要通过α-KIC促进胰岛素的分泌,从而抑制糖原异生,减缓肌肉蛋白的分解。
亮氨酸的代谢产物α-酮戊己酸(α-KIC)和β-羟基-β-甲基丁酸(HMB)也具有调节蛋白质代谢的作用。此外,β-羟基-β-甲基丁酸(HMB)作为亮氨酸的代谢产物,还具有缓解疲劳的作用。
众所周知,哺乳动物的雷帕霉素复合物1(mTORC1) 靶点是细胞生长和代谢的重要调节因子。当mTORC1被激活时,它会促进合成代谢并抑制分解代谢。
mTORC1的活性受到多种信号分子的影响,包括氨基酸。特别是,已知亮氨酸会影响mTORC1活性。在亮氨酸丰度状态下,亮氨酸传感蛋白通过多种机制被激活,然后引起mTORC1复合蛋白的募集和亚细胞定位,从而导致其激活和蛋白翻译的上调。
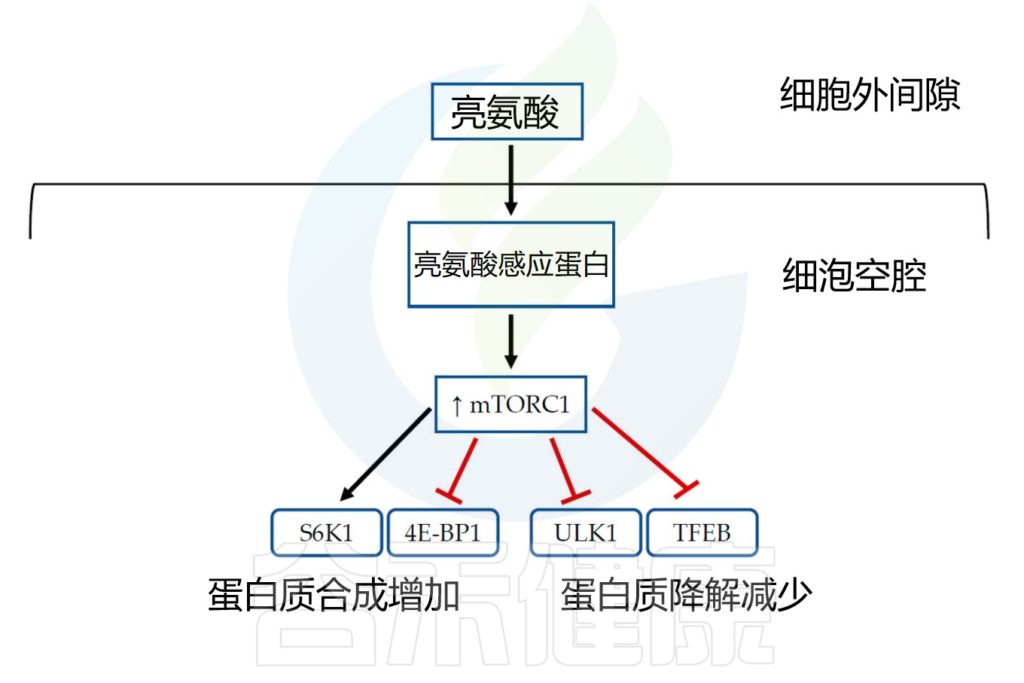
Beaudry AG,et al.Nutrients.2022
•亮氨酸促进能量分配到肌肉细胞
其主要代谢场所在肌肉中,在转氨酶作用下,亮氨酸将氨基转移给酮戊二酸生成谷氨酸,谷氨酸将氨基转移给丙酮酸生成丙氨酸。
亮氨酸通过调节线粒体生物发生来调节能量代谢,并促进脂肪酸氧化和线粒体生物发生。亮氨酸促进能量从脂肪细胞分配到肌肉细胞,导致脂肪细胞中的脂质储存减少并增加肌肉中的脂肪利用率。
此外,饮食中的亮氨酸通过促进骨骼肌中的脂肪酸合成来增加胰岛素敏感性。表明亮氨酸能够通过促进酶与其底物和烟酰胺腺嘌呤二核苷酸(NAD)+的亲和力来直接激活SIRT1,从而导致脂肪细胞和肌肉中的线粒体生物发生和脂肪酸氧化升高。
亮氨酸还促进相关激素的释放,如生长激素、IGF-1(胰岛素样生长因子-1),对于儿童和青少年的生长发育至关重要。
•饮食补充亮氨酸增强肌肉能量代谢,减少肥胖
研究证明亮氨酸可以防止高脂饮食诱导的线粒体损伤,并通过SIRT1介导的机制刺激线粒体生物发生和从脂肪细胞到肌肉细胞的能量分配。
与这些观察结果一致,已发现亮氨酸显著增强骨骼肌中的氧化能力并增加线粒体密度,部分是通过SIRT1依赖性途径AMPK介导的PGC-1α增加。亮氨酸增加线粒体生物发生和PGC-1α表达,表明亮氨酸可能部分通过调节PGC-1α表达来调节骨骼肌能量代谢。
此外,用低剂量白藜芦醇与亮氨酸或β-羟基-β-甲基丁酸联合喂养饮食诱导的肥胖小鼠,可以增加脂肪SIRT1活性、肌肉葡萄糖、棕榈酸摄取和胰岛素敏感性。改善炎症应激生物标志物,并减少肥胖。
在另一项研究中,发现补充亮氨酸可以减少体内脂肪,同时瘦素浓度也成比例下降。通过饮用水摄入亮氨酸导致高脂饮食喂养的小鼠肥胖减少25%,减少了饮食引起的肥胖、高血糖和高胆固醇血症。
肌肉减少症,是指因持续骨骼肌量流失、强度和功能下降而引起的综合症。
•补充亮氨酸可以增加肌少症患者的肌肉质量
目前的荟萃分析中,在不考虑体育锻炼的情况下,补充乳清蛋白、亮氨酸和维生素D可以有效增加肌少症患者的四肢肌肉质量。
•补充亮氨酸伴随锻炼可以更好改善身体表现
根据是否存在伴随体育锻炼对结果进行分析表明,补充乳清蛋白、亮氨酸和维生素D并伴有体育锻炼可以显著改善肌少症患者的握力和身体表现。相反,当体育锻炼不与乳清蛋白、亮氨酸或维生素D补充剂相结合时,食用它并没有显著改善肌少症患者的握力和身体机能。但无论是否伴随的体育锻炼,食用亮氨酸后四肢肌肉质量都会显著增加。
因此,我们认为,肌少症患者除了食用乳清蛋白、亮氨酸、补充维生素D外,还应结合体育锻炼。单独补充乳清蛋白、亮氨酸和维生素D,而不同时进行体育锻炼,对肌肉减少症患者产生积极治疗效果的能力有限。
•摄入亮氨酸对于老年患者保持肌肉质量很重要
充足的蛋白质摄入对于老年患者保持肌肉质量和功能至关重要。
据报道,摄入乳清蛋白和亮氨酸可提供足够量的必需氨基酸,尤其是亮氨酸,它对于适当的肌肉合成至关重要。
此外,维持血清25-羟基维生素D浓度的最佳水平(50-75nmol/L)对于维持四肢肌肉的足够力量和增强蛋白质合成代谢是必要的。因此,我们相信补充乳清蛋白、亮氨酸和维生素D有助于保持肌肉减少症患者的肌肉质量并改善肌肉功能。
25羟维生素D是维生素D在体内的主要存在形式。
建议
总之,食用乳清蛋白、亮氨酸和维生素D补充剂可以增加肌肉减少症患者的四肢肌肉质量。此外,将体育锻炼与补充乳清蛋白和亮氨酸相结合可显著提高肌肉力量和表现。
因此,临床医生可以考虑建议肌少症患者补充乳清蛋白、亮氨酸和维生素D,同时进行体育锻炼。
肠道微生物在亮氨酸的代谢和利用中扮演着重要的角色。接下来将讲述肠道微生物群与亮氨酸直接可能对存在的相互作用。
人们普遍认为代谢健康和代谢稳态的许多方面都受到肠道的影响。肠道屏障在预防感染方面发挥着重要作用,是抵御细菌和病毒抗原的第一道防线。
•补充亮氨酸可以改善肠上皮细胞的能量代谢
亮氨酸对肠道脂质和能量代谢的影响已开始引起人们的关注。在肠上皮细胞中,亮氨酸已被证明可以激活多种参与生物体代谢调节的信号传导途径。
特别是,发现补充亮氨酸可以通过降低活性氧水平来显著调节断奶小猪模型肠上皮细胞的能量代谢,活性氧的稳态对猪的健康至关重要。
活性氧的减少是通过mTOR缺氧诱导因子-1α途径从氧化磷酸化转变为糖酵解来诱导的。
•亮氨酸调节肠道脂肪酸氧化
肠道脂肪酸氧化是一条关键的代谢途径,不仅有助于肠道细胞的能量稳态,而且有助于整个生物体的能量稳态。
研究发现,抗肥胖小鼠的小肠脂质分解代谢能力较高,摄入亮氨酸后对肠道脂肪酸氧化的刺激与体重减轻有关。
事实上,肠道脂肪酸氧化受亮氨酸调节。具体来说,研究表明,补充亮氨酸可能会减缓人十二指肠粘膜中的脂肪酸氧化,涉及四种与脂质代谢相关的蛋白质:HADHA(三功能酶亚基α)、ACADVL(酰基辅酶A脱氢酶超长链)、CPT2(肉碱O-棕榈酰转移酶)和FABP1(肝脏脂肪酸结合蛋白)。
哺乳动物肠道微生物群由数万亿个微生物组成,其中一些微生物有利于宿主健康,包括赋予对胃肠道疾病的定植抵抗力。
人们关注到饮食(如膳食亮氨酸)调节肠道微生物群的组成和功能,从而调节脂质代谢并影响健康的机制。
•亮氨酸通过影响肠道微生物的组成来减少肥胖
临床和临床前研究表明,饮食中的支链氨基酸,尤其是亮氨酸,对人类发挥有益作用,包括增加线粒体呼吸作用、减少氧自由基的产生、影响脂质代谢,并最终延缓肠道微生物群的年龄依赖性变化。
膳食亮氨酸、宿主和微生物群之间的作用是相互的,膳食亮氨酸对肠道微生物群落的组成具有关键影响;反过来,微生物会影响从摄入的食物中获取亮氨酸的效率。
亮氨酸通过塑造肠道微生物组的组成来发挥抗肥胖作用,这往往会逆转短链脂肪酸的改变并产生丙酸,同时改善微生物多样性并介导脂质代谢。
•亮氨酸通过短链脂肪酸调节微生物群
三种支链短链脂肪酸(异丁酸、2-甲基丁酸和异戊酸)主要来源于支链氨基酸的分解代谢。这些短链脂肪酸已被广泛认为既可以作为宿主能量来源,又可以作为信号分子,将肠道微生物群的代谢活动与宿主能量稳态联系起来,特别是通过调节脂质代谢。
亮氨酸可能通过支链短链脂肪酸调节微生物群和肠道脂质代谢,这种现象必须进一步研究。短链脂肪酸刺激一些细胞因子的表达,例如瘦素、IL-10和 IL-18。
此外,短链脂肪酸通过G蛋白偶联受体调节脂肪细胞中的脂肪分解,随后对脂质代谢产生进一步影响。高脂饮食引起的肥胖可以通过调节肠道微生物群来缓解,因为高脂饮食喂养的小鼠中短链脂肪酸减少,同时肠道微生物失调和脂质积累加重。
•肠道微生物群协助肠上皮细胞干预亮氨酸代谢
肠道微生物群在一定程度上改变氨基酸代谢,这被认为会影响许多生理功能。研究证明肥胖受试者的肠道微生物群诱导循环支链氨基酸显著增加,这是肥胖状态的特征。
亮氨酸诱导的脂质代谢与肠道微生物群的脂质代谢密切相关,因为肠道微生物可能协助肠上皮细胞吸收并干预亮氨酸代谢。
最近,粪便微生物群移植已成为肥胖症的一个重要研究领域和治疗方法。这种研究方法也可用于研究脂质代谢——移植产生亮氨酸代谢物的微生物已被观察到以依赖饮食的方式发挥抗肥胖作用。
然而,目前尚不清楚亮氨酸如何靶向肠道微生物群来调节脂质代谢和预防肥胖,这表明需要进一步研究来确定其潜在机制。
亮氨酸缺乏会导致动物胸腺和脾萎缩,淋巴组织受损,并使免疫球蛋白、补体C3和铁转运蛋白水平降低,断奶猪仔缺乏亮氨酸会导致合成特异性抗体的能力下降。
补体C3是血清中含量最高的补体成分,主要由巨噬细胞和肝脏合成,在补体经典激活途径和旁路激活途径中均发挥重要作用。补体C3的升高或降低,对于患者疾病的诊断、预后恢复情况以及病情的监测具有重要意义。
研究发现,添加瘤胃保护性α-KIC(0.05%)可增强羔羊抗猪红细胞的抗体反应与淋巴细胞增殖反应;绵羊饲养中添加亮氨酸与α-KIC,可调节其T-淋巴细胞亚群的免疫功能。
★
哺乳动物雷帕霉素靶蛋白(mTOR)是免疫功能的重要调节剂。mTOR被认为是一个信号中枢,它感知和整合来自免疫微环境的信息,以组织与细胞生长、增殖和死亡相关的反应。
近年来,mTOR被确定为适应性免疫的主要调节因子,如记忆CD8+和CD4+ T细胞分化和人类树突细胞的文献中所述。
mTOR信号通路也在先天免疫中发挥作用,被认为在先天免疫细胞(如先天样自然杀伤细胞、单核细胞、中性粒细胞、肥大细胞、巨噬细胞和树突细胞)激活后触发效应反应。
•亮氨酸可能是一种潜在的抗炎剂
有证据表明mTOR通路信号在促炎和抗炎细胞因子的调节中发挥作用。雷帕霉素在Toll样受体刺激过程中抑制mTORC1已被证明可以通过增强NF-κB信号传导增加促炎细胞因子IL-12的表达,并通过抑制STAT3信号传导减少抗炎性IL-10的表达。
基于mTOR通路信号传导的潜在抗炎作用,支链氨基酸喂养可能会减少疾病或肌肉损伤期间的炎症。因此,亮氨酸可能通过其对mTOR通路的影响而成为潜在的抗炎剂。
然而,亮氨酸如何通过mTOR激活特异性介导炎症信号传导还需要进一步探索。
除了促进肌肉的合成和脂肪的分解以及一些代谢类疾病外,有研究发现亮氨酸在其他疾病中也有影响作用,下面两章将为大家讲述亮氨酸在其他一些疾病中的作用。
亮氨酸在神经疾病中的作用越来越受到重视。在了解抑郁症中的作用之前,我们先来了解一下亮氨酸是如何影响神经系统的。
亮氨酸是合成重要神经递质的前体物质之一,例如多巴胺、去甲肾上腺素和肾上腺素。这些神经递质在神经系统中起着调节心情、注意力、情绪和认知功能的作用。
亮氨酸还可以影响神经传递的速度。研究表明,亮氨酸可以增加神经传递物质的释放和神经元之间的通讯速度,从而促进神经信号的传递效率。
有研究发现亮氨酸在改善抑郁症社交回避行为中起到一定作用。
营养对情绪状态的保持至关重要。临床研究发现,抑郁症患者血清中许多必需氨基酸发生改变,如色氨酸、苏氨酸、亮氨酸、异亮氨酸和缬氨酸。目前,已有一些必需氨基酸的补充被认为有助于改善抑郁行为,但某种必需氨基酸的缺乏是否会对抑郁行为造成影响呢?
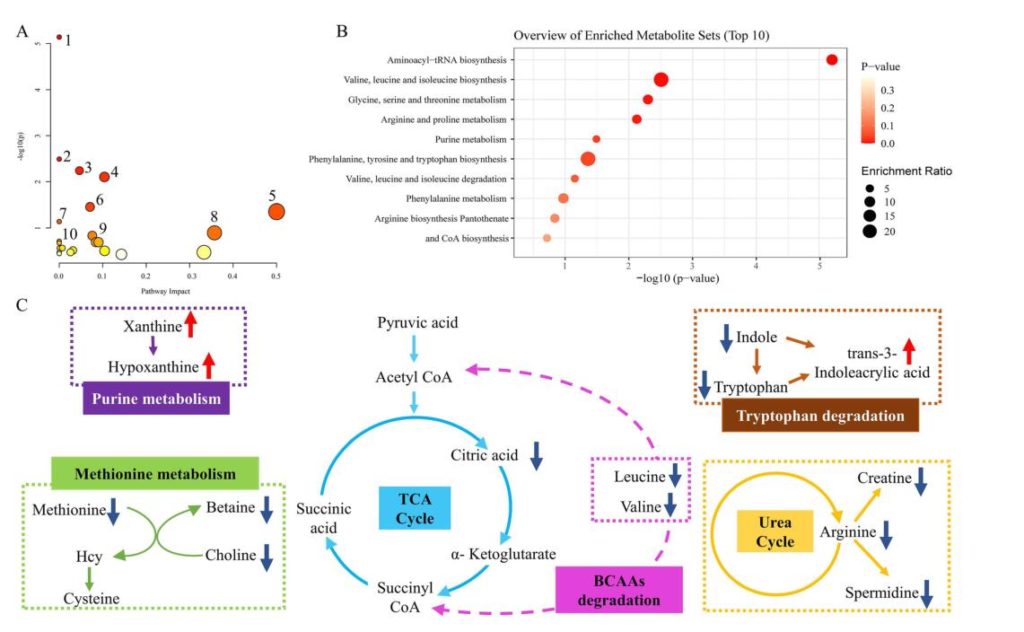
为了探讨抑郁和社交回避行为的潜在机制,研究人员使用MetaboAnalyst 5.0网站对差异代谢物进行分析。选择KEGG数据库中的Mus musculus pathway library来支持结果(图A)。y轴的-log(P)表示显著性,-log(P)值越大表示差异越显著。Impact越大表示节点命中,节点命中表示代谢属于该通路的比例有多大。
当使用KEGG数据库支持分析时,排名前十的途径包括:(1)氨基酰基trna生物合成;(2)缬氨酸、亮氨酸和异亮氨酸生物合成;(3)甘氨酸、丝氨酸和苏氨酸代谢;(4)精氨酸和脯氨酸代谢;(5)苯丙氨酸、酪氨酸和色氨酸生物合成;(6)嘌呤代谢;(7)缬氨酸、亮氨酸和异亮氨酸降解;(8)苯丙氨酸代谢;(9)精氨酸生物合成;(10)泛酸和辅酶a生物合成。
可以看到,同样的途径集中在氨基酸代谢和脂肪酸代谢。富集分析用于支持上述结果(图B)。
Wang Q,et al.Food Funct.2023
结果还表明,氨基酸代谢和脂肪酸代谢在其潜在机制中起重要作用。如图C所示,氨基酸代谢占很大比例,如色氨酸降解、支链氨基酸降解、蛋氨酸降解。还有其他几种代谢途径,包括嘌呤代谢,TCA循环和尿素循环。因此,进一步研究了支链氨基酸和色氨酸含量的变化。
亮氨酸是社交回避行为相关的关键代谢物
进行Spearman相关分析以确定与社交回避和抑郁样表现相关的关键代谢物。在六个行为指标中,SIR被认为是评估社交回避行为的最佳指标。
结果表明,亚精胺、肌酸、缬氨酸、柠檬酸、黄嘌呤、亮氨酸、甜菜碱、尿酸、苯丙氨酸、PEG-4、棕榈酰肉碱、血小板活化因子、亚油酰胺、油酰胺、醋酸视黄酯、花生四烯酸等16种代谢物与SIR呈显著正相关,其中亮氨酸与SIR呈特异且极显著正相关。
其他15种代谢物虽然与SIR相关,但也与其他行为指标相关。
补充外源性亮氨酸可改善社交回避和抑郁行为
采用CSDS模型(慢性社会挫败应激模型)验证外源性亮氨酸补充,进一步评估其在社交回避和抑郁行为中的作用。
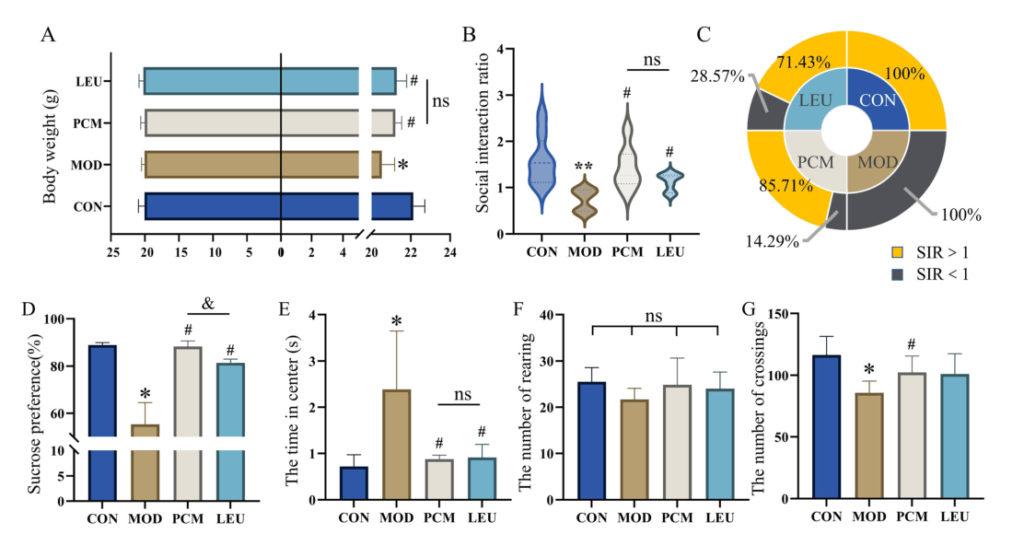
选择盐酸帕罗西汀作为阳性对照药物。适应期结束时,四组间体重无显著差异。在CSDS应激后,亮氨酸可以逆转CSDS引起的体重缓慢增加,其效果略低于阳性药物,但无显著差异。
此外,亮氨酸改善了小鼠的社交回避行为,在社交互动测试中,在社交区停留的时间比例显著高于MOD组。低亮氨酸组的社交回避行为发生率略高于PCM组。同时,亮氨酸也能在一定程度上改善抑郁引起的兴趣和流动性下降。
Wang Q,et al.Food Funct.2023
综上所述,外源性补充亮氨酸可在一定程度上调节小鼠抑郁样行为,改善小鼠社交回避行为。在先前的基础上,亮氨酸可能是抑郁和社交回避行为过程中重要的小分子化合物。
亮氨酸与抑郁症相关的横向证据
支链氨基酸和色氨酸是竞争性抑制关系,它们会穿过血脑屏障并影响相应的大脑功能。亮氨酸的活性在支链氨基酸中最高,我们发现亮氨酸在外周和中枢神经系统中的含量降低。
在更高浓度下,亮氨酸触发下丘脑神经元中的mTOR信号级联。几项研究表明,mTOR在抑郁症患者和模型动物中的表达降低。上述信息是亮氨酸与抑郁症之间潜在关系的横向证据。
因此,当体内亮氨酸减少时,更多的色氨酸会通过LAT-1转化到大脑中。CDSD小鼠的研究也表明,当色氨酸进入大脑时,海马中的色氨酸更多地代谢为犬尿氨酸。
最近的一项研究表明,亮氨酸与LAT-1联合给药阻碍了犬尿氨酸向大脑的转运,从而阻止了对脂多糖反应时抑郁样行为的发展。犬尿氨酸途径由炎症因子触发,激活并破坏其神经保护和神经毒性分支之间的平衡。色氨酸向犬尿氨酸的代谢增加也会降低其向5-羟色胺的代谢,进一步促进抑郁症的发作。
思考
总之,这项研究验证了亮氨酸对抑郁状态和社交回避行为的积极影响。同时,它为亮氨酸在神经疾病中的重要作用提供了新的证据。
▸ 什么是癌症恶病质?
癌症恶病质是一种身体消瘦和进行性功能衰退的复杂综合征,其中骨骼肌和脂肪量持续减少。癌症恶病质会降低癌症治疗的耐受性和有效性,同时还会导致严重的疲劳和虚弱;此外,它还会降低预期寿命和生活质量。
★ 补充亮氨酸改善癌症恶病质对机体的影响
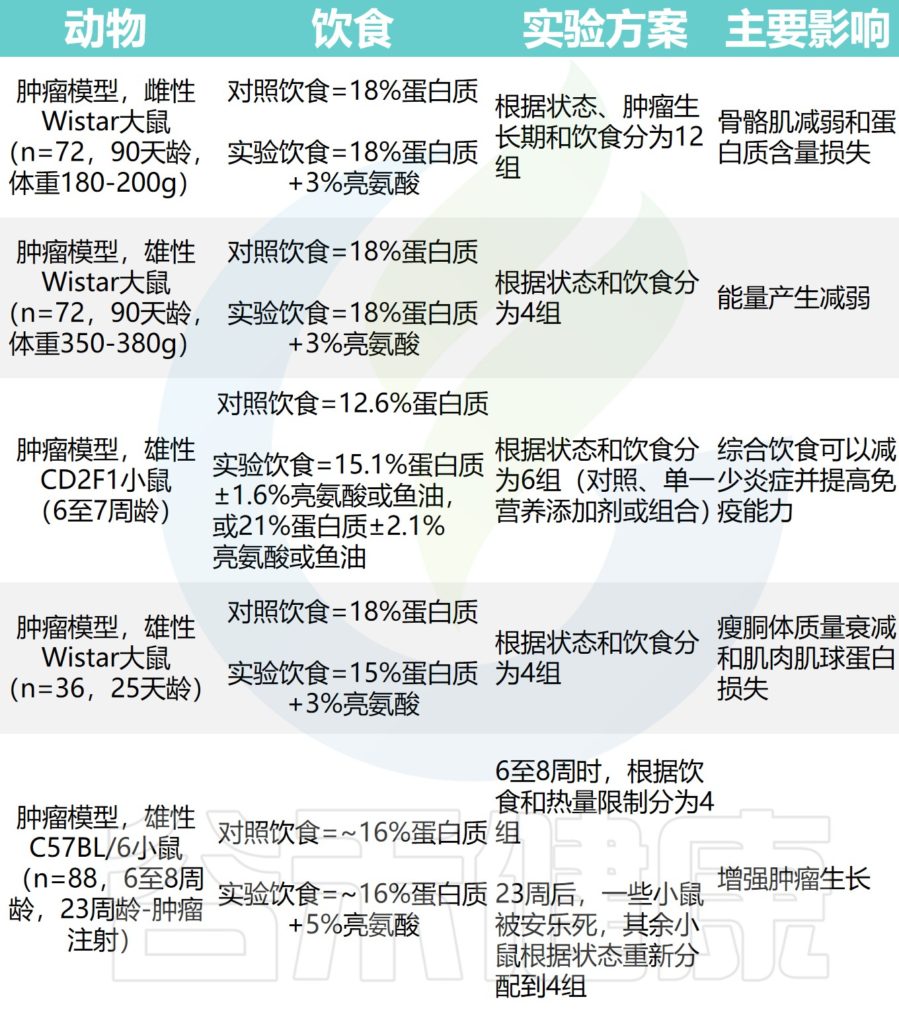
与饥饿不同,恶病质不能通过单独增加能量摄入来逆转。尽管如此,有针对性的营养支持是多模式综合征管理的必要组成部分。有趣的是,亮氨酸被发现可以通过mTORC1通路激活来增加蛋白质合成并减少蛋白质降解。多项临床前研究探讨了补充亮氨酸对恶病质肿瘤宿主的影响。
癌症恶病质动物模型的亮氨酸补充研究
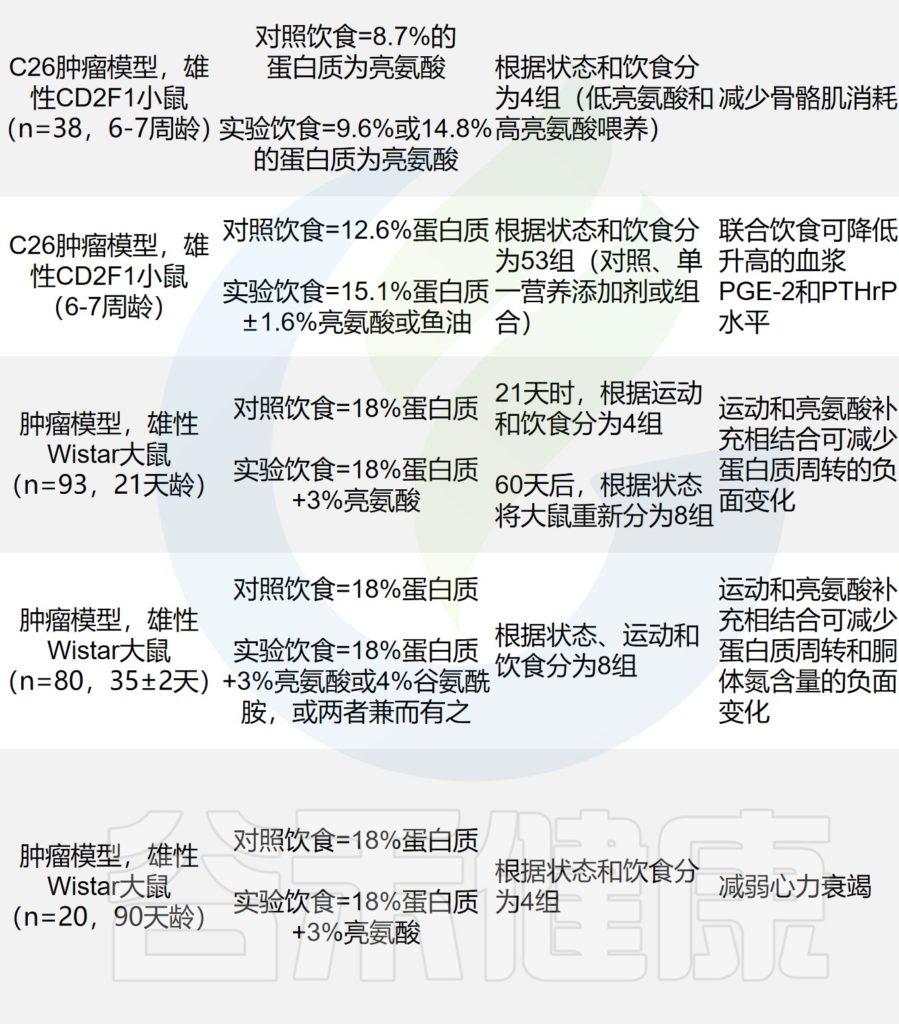
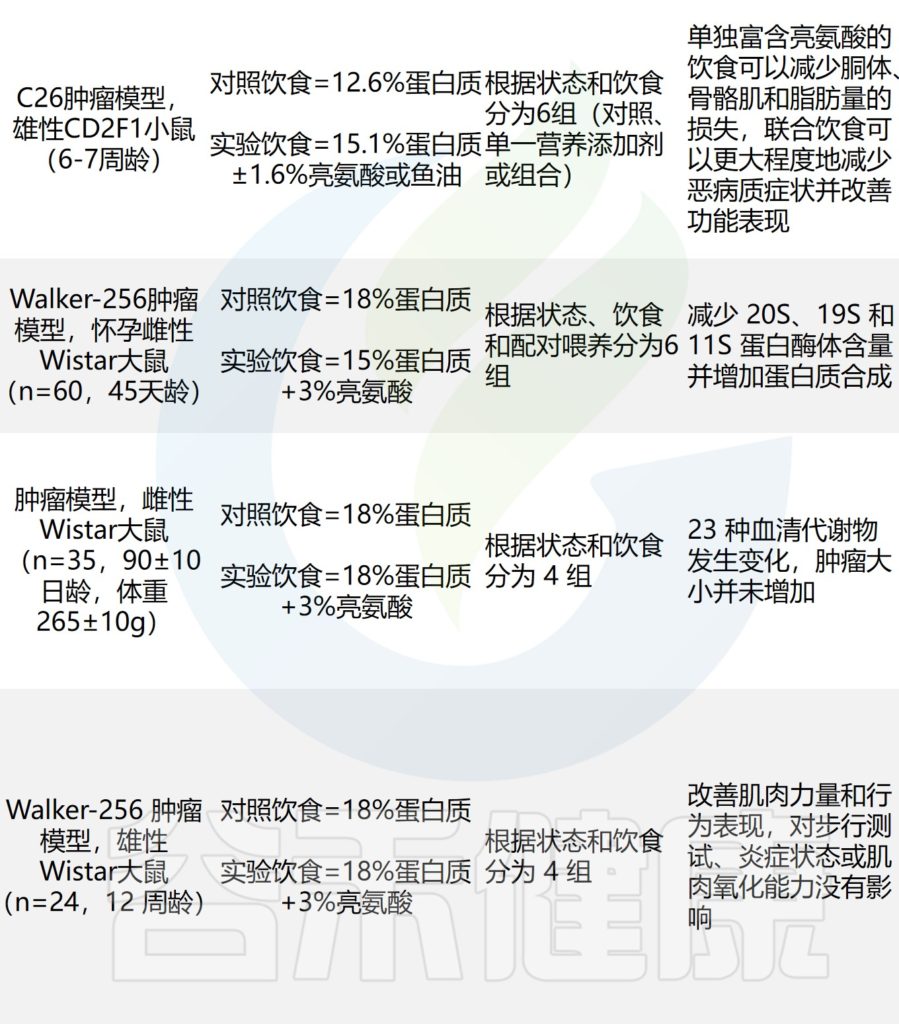
Beaudry AG,et al.Nutrients.2022
在14项临床前癌症恶病质研究中,13项表明富含亮氨酸的喂养可能是癌症恶病质的有益附加治疗。
关于亮氨酸对癌症恶病质的影响存在局限性
目前,所有专门研究癌症恶病质期间富含亮氨酸喂养应用的文献仅限于临床前啮齿动物研究。尽管由于各种原因它非常有益,但临床前恶病质研究具有固有的局限性。模型之间存在差异,例如恶病质发生机制(癌细胞注射、致癌物质暴露、肿瘤移植等)、宿主的年龄和性别、啮齿动物的类型和品系、恶病质发生率、肿瘤位置(异位与原位)和负担、肿瘤是否转移以及抗癌药物的使用。这种变异性使得临床前癌症恶病质的研究变得困难,同时也限制了对人群的可转化性。
此外,目前所有与癌症恶病质背景下亮氨酸补充相关的临床前文献都是使用雄性或雌性啮齿动物进行的。没有研究同时使用两种性别。因此,无法探究性别差异。
检查动物研究时的另一个重要考虑因素是蛋白质代谢的种间差异。与人类相比,啮齿动物的蛋白质周转率更高,估计快大约10倍。总之,这些因素使当前工作的综合变得复杂,并使结果的整体解释变得困难。需要进行更标准化的工作,以进一步探索癌症恶病质背景下补充亮氨酸的安全性和有效性。
亮氨酸作为必需氨基酸之一,意味着你的身体无法合成它,所以必须通过食物来源获得。
亮氨酸可以通过服用补充剂的形式获得,也可以通过食用肉类、海鲜、家禽、鸡蛋、奶制品、坚果等食物获得。
搭配营养丰富且全面的饮食一般不会亮氨酸缺乏。大多数人可以安全地食用食物中的这种氨基酸,反而高剂量的补充剂会引起副作用和毒性。
迄今为止,亮氨酸及其代谢物已被证明通过直接或间接增加脂肪酸的氧化和改善代谢健康,它还被证明可以促进和保持肌肉质量、改善运动表现、促进脂肪减少、稳定血糖水平并支持肌肉恢复。
此外,亮氨酸可能具有减轻线粒体功能障碍的附加作用,代表了一种针对衰老、神经退行性疾病、肥胖、糖尿病和心血管疾病的新治疗方法。
亮氨酸有潜力用作人类健康和工业生产的功能性添加剂。然而,有必要进行更多的实验来深入了解其调控机制。
关于亮氨酸的应用
1
临床应用
亮氨酸是临床上选用的复合氨基酸静脉注射制剂中不可缺少的原料,对维持危重病人的营养需求,挽救病人的生命等方面起到了积极的作用。
亮氨酸还应用于肝病及肝性脑病的治疗;此外,亮氨酸在一些神经系统疾病的治疗中可能起到一定的作用。例如,亮氨酸被用于治疗帕金森病,因为它可以作为多巴胺的前体物质,增加多巴胺的合成。
2
食品应用
亮氨酸可以应用于运动饮料补充剂,以减轻运动所引起的肌肉损伤,增强运动能力及减少疲劳。还可作为食品添加剂改善食品风味。
亮氨酸还用于增加食品的营养价值,例如蛋白质补充剂的配方中,以增加蛋白质的含量和完整性。
3
畜牧养殖
亮氨酸在动物生产性能、机体免疫功能和肉品质方面有较多的研究和应用。例如,饲料中添加适量的亮氨酸能够促进生长中期草鱼的生长,改善肌肉品质。
亮氨酸对畜禽动物的繁殖效果也有积极影响。它可以提高动物的生殖能力,增加繁殖成功率。
4
化妆品应用
亮氨酸在化妆品和护肤品中也有应用、提亮肤色、改善皮肤质地、减少色斑。
亮氨酸具有抗氧化作用,可以帮助减少自由基对皮肤的损害,从而延缓皮肤衰老的过程。它可以用于抗衰老产品,如抗皱霜、紧致精华等。
亮氨酸还可以促进皮肤细胞的修复和再生,加速伤口愈合和皮肤恢复。它常被用于修复霜、面膜等产品中。
总的来说,亮氨酸作为一种必需氨基酸,在人体中具有多种重要功能,例如促进生长发育,调节能量代谢,影响机体免疫等,广泛应用于食品、化妆品、医药和生物技术等领域。
肠道菌群检测报告中亮氨酸指标过高或过低的结果能够提供有关肠道菌群代谢功能以及与健康风险相关的信息,当发现亮氨酸水平异常时,可能意味着肠道菌群的代谢功能出现阶段性波动或者紊乱,也可能与本文中提到的一些代谢过程或者疾病的发生和发展相关。
主要参考文献
Chang MC, Choo YJ. Effects of Whey Protein, Leucine, and Vitamin D Supplementation in Patients with Sarcopenia: A Systematic Review and Meta-Analysis. Nutrients. 2023 Jan 19;15(3):521.
Zhang L, Li F, Guo Q, Duan Y, Wang W, Zhong Y, Yang Y, Yin Y. Leucine Supplementation: A Novel Strategy for Modulating Lipid Metabolism and Energy Homeostasis. Nutrients. 2020 May 2;12(5):1299.
Beaudry AG, Law ML. Leucine Supplementation in Cancer Cachexia: Mechanisms and a Review of the Pre-Clinical Literature. Nutrients. 2022 Jul 9;14(14):2824.
Wang Q, Wu Z, Xiang H, Zhou Y, Qin X, Tian J. Revealing the role of leucine in improving the social avoidance behavior of depression through a combination of untargeted and targeted metabolomics. Food Funct. 2023 Jul 17;14(14):6397-6409.
Millward DJ. Leucine requirements for the elderly. Am J Clin Nutr. 2021 Apr 6;113(4):1056-1057.
Holeček M. The role of skeletal muscle in the pathogenesis of altered concentrations of branched-chain amino acids (valine, leucine, and isoleucine) in liver cirrhosis, diabetes, and other diseases. Physiol Res. 2021 Jul 12;70(3):293-305.
Szwiega S, Pencharz PB, Rafii M, Lebarron M, Chang J, Ball RO, Kong D, Xu L, Elango R, Courtney-Martin G. Dietary leucine requirement of older men and women is higher than current recommendations. Am J Clin Nutr. 2021 Feb 2;113(2):410-419.
Wilkinson K, Koscien CP, Monteyne AJ, Wall BT, Stephens FB. Association of postprandial postexercise muscle protein synthesis rates with dietary leucine: A systematic review. Physiol Rep. 2023 Aug;11(15):e15775.