-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
谈到代谢与衰老,我们习惯按器官划分问题:血糖异常归到胰腺和肝脏,脂肪堆积归到脂肪组织,肌少症归到骨骼肌,骨质下降归到骨骼,记忆力减退则归到大脑。但越来越多研究显示,身体并不是由彼此孤立的器官拼接而成,而是一个持续交换信息、共同调整状态的动态网络。
脂肪组织可以向大脑发送信号,骨骼肌可以把运动状态“报告”给脂肪、骨骼和海马体,骨骼也能通过分泌因子影响胰岛素敏感性和能量代谢;与此同时,代谢物、细胞因子、细胞外囊泡、微小RNA,甚至线粒体相关的压力信号,都可能在器官之间传递信息。大脑中的下丘脑则像一个高层级的整合中枢,把来自外周的激素、代谢和感觉信息汇总起来,再通过自主神经系统把调节指令发送回去。
这套机制被称为器官间通信(inter-organ communication,IOC)。它不仅帮助机体维持血糖、能量、体温、骨量和免疫状态等代谢稳态,也可能参与衰老速度和健康寿命的调节。文献指出,随着年龄增长,原本有益的器官间信号可能减弱,而慢性炎症、衰老相关分泌表型等不利信号则逐步增加,最终形成一个“全身性”的功能衰退回路。
从这个角度看,衰老更像是一张通信网络逐渐失去弹性:有些通路变慢,有些反馈失真,有些信号长期处于“过度发送”状态。理解这些变化,不是为了把某一种检测结果直接等同于衰老,也不是为了寻找一个可以包治百病的指标,而是为了更好地理解身体各系统之间怎样互相影响,以及未来如何更精准地干预。
传统生理学通常把垂体、肾上腺、胰腺、甲状腺、睾丸和卵巢视为经典内分泌器官。它们通过激素进入血液,作用于远处组织。
如今,研究者越来越倾向于把“内分泌器官”的概念扩展到更多组织:只要一个组织能够释放体液信号,并对远处细胞产生可重复的生理影响,它就可能是全身通信网络的一部分。
✲ 身体可以使用多种“通信语言”
脂肪组织、骨骼肌和骨骼过去常被视为储能、运动或支撑结构,但它们都能分泌具有远程作用的分子。脂肪细胞因子(adipokines)、肌因子(myokines)和骨源性因子共同构成了一个复杂的分泌网络。
器官之间的通信也并不只有一种“语言”:有时是可溶性的激素和细胞因子,有时是包裹在细胞外囊泡里的蛋白质、脂质和核酸,有时是代谢物浓度的改变,有时则通过感觉神经和交感神经完成。
✲ 从单个分子走向整体网络
这种多层次通信的意义在于,一个器官的状态变化可以迅速影响整个机体。例如,运动使骨骼肌收缩,肌肉不仅消耗能量,还释放一批肌因子;这些信号可以作用于脂肪组织、肝脏、骨骼、血管和大脑,帮助身体适应运动负荷。相反,长期炎症、肥胖或久坐也会改变分泌信号的组成,使不同器官之间的反馈逐渐偏向代谢失衡。
过去三十年里,胰岛素/胰岛素样生长因子1(IGF-1)信号、雷帕霉素机制靶标(mTOR)信号以及依赖 NAD+ 的 Sirtuin 家族脱乙酰酶/去酰基酶等通路,被认为是连接代谢、衰老和寿命调控的重要节点。
现在,组学技术和遗传工程工具进一步让研究者能够追踪“谁在分泌、分泌了什么、到达哪里、产生了什么效应”,从而把研究视线从单个分子扩展到器官之间的整体关系。
脂肪细胞因子能影响代谢稳态
瘦素和脂联素的发现改变了人们对脂肪组织的认识。脂肪组织并非被动的能量仓库,而是能够感知营养状态、炎症状态和运动刺激,并把这些信息以分泌因子的形式传递出去。
脂肪组织可以分泌转化生长因子-β2
研究显示,运动刺激后,脂肪组织可以分泌转化生长因子-β2(TGF-β2),在小鼠中改善葡萄糖耐受。
脂肪组织还可以分泌细胞外烟酰胺磷酸核糖转移酶(eNAMPT)。与主要参与细胞内 NAD+ 合成的 iNAMPT 不同,eNAMPT 可以被装载进细胞外囊泡,进入循环后到达下丘脑、海马、伏隔核、胰腺和视网膜等部位,促进局部 NAD+ 生物合成。
NAD+ 是许多细胞代谢与应激反应的重要辅酶,也是 SIRT1 等蛋白去乙酰化酶发挥作用所需的分子。
研究表明,脂肪组织来源的 eNAMPT-EV 信号与小鼠的衰老表型和寿命存在联系,但这并不意味着“提高某一个分子”就能直接延长人的寿命。现有证据主要来自细胞和动物模型,距离人群干预仍有很长的验证路径。
白色脂肪、棕色脂肪与“产热沟通”
棕色脂肪组织还可以分泌一类被称为棕色脂肪因子(batokines)的体液因子。它们既能在局部发挥自分泌和旁分泌作用,也可能进入循环,对远处器官产生影响。
需要注意的是,目前并没有一个已经被普遍确认、且只由棕色脂肪特异分泌的“唯一 batokine”。因此,batokine 更准确地说是一个功能性分类:指相对偏向由棕色脂肪组织分泌、并具有内分泌作用的因子。
脂肪能向其他组织反馈营养与应激状态
白色脂肪组织也可以在特定刺激下发生“米色化”或“褐变”,表达解偶联蛋白1(UCP1),增强产热。运动、寒冷和某些肌因子可能参与这一过程。由此可见,脂肪组织与骨骼肌之间并非单向关系:肌肉活动能够影响脂肪的能量处理方式,脂肪又能向大脑和其他组织反馈营养与应激状态。
肌肉收缩也是一种“分泌事件”
运动的好处当然包括消耗多余能量,但“运动为什么能改善全身代谢”并不能只用热量消耗解释。骨骼肌收缩时,会释放一系列被称为肌因子的信号蛋白。
肌因子如何连接脂肪、骨骼和大脑?
白细胞介素6(IL-6)和肌肉生长抑制素(myostatin)是研究较早、较充分的肌因子。肌肉来源的 IL-6 可以参与多个组织的葡萄糖处理、脂肪分解、氧化代谢和能量消耗;myostatin 则与胰岛素敏感性、葡萄糖利用及骨形成有关。FGF21和irisin 等因子可能促进白色脂肪细胞表达 UCP1,从而增强产热。
肌因子可能具有神经保护、心脏保护、骨形成等作用
运动对大脑的影响也可能部分依赖肌肉分泌信号。irisin 和组织蛋白酶B(cathepsin B)被报道可以通过诱导脑源性神经营养因子(BDNF),促进海马神经发生并产生神经保护效应。
另一些肌因子则与血管生成、骨形成和心脏保护有关。换句话说,一次运动产生的“信息”并不会停留在肌肉局部,而可能被分配给多个器官。
这里的关键不是把某一个肌因子包装成“运动替代品”,而是理解运动的系统效应:肌肉收缩、神经活动、激素变化、代谢物变化和免疫反应是同时发生的。
未来真正有价值的研究,可能不是寻找单一的“运动神奇分子”,而是解析不同信号组合在不同年龄、性别和代谢状态下的作用。
骨钙素与全身能量代谢有关
骨骼长期以来被视为支撑身体、保护内脏和储存矿物质的结构。近年来的研究进一步显示,骨骼可以作为复杂的内分泌器官,参与全身能量代谢调节。
骨钙素是骨组织产生的重要因子之一。循环骨钙素与胰岛素分泌、胰岛素敏感性、血糖水平和内脏脂肪组织等指标有关。骨髓间充质干细胞除了参与骨髓微环境和造血调控,也可以分泌影响全身能量代谢的活性分子。
编辑
骨骼也在向大脑反馈信息
骨髓间充质干细胞能调节胰岛素抵抗
一个具有代表性的例子是骨髓间充质干细胞来源的外泌体 miR-29b-3p。研究提示,它可以通过 SIRT1 信号调节与年龄相关的胰岛素抵抗。
不过这里需要强调,动物模型中的机制发现不等于临床上已经可以用骨钙素或某一种 miRNA 诊断衰老,更不等于单独补充某个因子就能复制完整的骨—胰腺—脂肪轴效应。
骨骼还与神经系统形成双向回路。骨细胞释放的前列腺素E2(PGE2)可以激活感觉神经上的 EP4 受体,信号上行至腹内侧下丘脑核(VMH),再调节下行交感神经张力,影响骨髓间充质干细胞向成骨细胞分化。骨骼因此不只是“接受激素调节”的终端,也可能把局部状态反馈给大脑。
细胞外囊泡(EVs)是由细胞释放到细胞外空间的脂质双层颗粒,大小和组成具有异质性。它们能够携带蛋白质、脂质、代谢相关分子和核酸,从而把一批信号完整地送到远处组织。
为什么EVs还不能当作成熟的衰老指标?
运动诱导的骨骼肌来源 EVs,被认为能够重塑代谢并产生有益的心血管效应;年轻血浆来源的小型 EVs 也在小鼠研究中显示出改善线粒体能量代谢、缓解部分年龄相关功能下降的潜力。
与此同时,EVs 还可能参与细胞衰老、代谢功能障碍、心血管疾病、肿瘤和神经退行性疾病等过程。
但 EVs 的研究仍处在“看见局部、尚未完全了解”的阶段。我们知道它们能够运输信息,却还不完全清楚:哪些因子被装入哪一种 EVs,哪些 EVs 会被哪些细胞摄取,剂量、时间和年龄如何改变效果。将“检测到某类 EVs”直接等同于“预测一个人的衰老速度”,目前缺乏足够依据。
循环代谢物记录着多个器官的代谢状态。代谢物谱发生变化,往往意味着代谢流、能量利用或细胞稳态出现了调整。它们不仅是反应的“产物”,也可能反过来作为信号分子,改变远处组织的行为。
从α-酮戊二酸到单不饱和脂肪酸都可能与寿命相关
例如,α-酮戊二酸是三羧酸循环中的关键代谢物。动物研究显示,补充 α-酮戊二酸可以延长小鼠寿命、压缩患病期,并降低系统性炎症细胞因子水平。
脂质代谢物中的单不饱和脂肪酸(MUFAs)也在动物模型中与寿命延长相关,遗传学或膳食方式增加 MUFAs 都可能产生类似结果。
在代谢和衰老过程中不同器官之间通信所涉及的成分
编辑
doi: 10.1016/j.tem.2024.11.013.
细胞因子与衰老相关分泌表型
细胞因子并非天然有害
细胞因子并不天然等于“坏信号”。在合适的时间、剂量和组织环境中,它们可以帮助器官适应挑战;但当信号持续升高、失去控制,便可能推动全身功能下降。
在果蝇中,细胞因子 unpaired 1(upd1)可以通过睾丸—肠双向作用,调节肠道代谢、精子发生和摄食。哺乳动物研究则显示,外源给予血小板因子4(PF4,也称 CXCL4)可能减轻老年小鼠海马炎症,改善突触可塑性和认知表现。
炎症信号何时会变成系统性风险?
另一面是炎症因子过度释放。急性胰腺炎可能通过细胞因子介导的炎症反应造成肺和肠道等多器官损伤;COVID-19 严重病例中的“细胞因子风暴”则说明,促炎因子持续高水平释放会导致组织损伤、多器官衰竭甚至死亡。
注:果蝇肝样细胞中年龄依赖性升高的 upd3(与哺乳动物 IL-6 同源)也被报道与心脏衰老有关。
编辑
衰老细胞的衰老相关分泌表型(SASP)是另一个重要环节。衰老细胞可以分泌炎症细胞因子、免疫调节分子、生长因子和蛋白酶,推动“炎症性衰老”。因此,清除衰老细胞的Senolytics(衰老细胞清除剂),以及抑制 SASP 的Senolytics(衰老细胞裂解剂)或 senomorphics,都成为研究热点。
不过,衰老细胞并不总是有害。部分高表达 p16 的衰老细胞参与维持血液—组织屏障;如果不加区分地清除,可能引起肝脏和血管周围组织纤维化,反而损害健康。近期研究也提示,衰老并非单一状态,而是包含多个细胞状态和组织生态位。因此,与其简单地“清除所有衰老细胞”,更可能的方向是精准调节其分泌表型,例如影响 NF-κB、JAK-STAT 和 mTOR 等参与 SASP 激活与维持的通路。
非编码RNA也能跨器官传递
miRNA如何搭乘EVs跨组织移动?
微小RNA(miRNA)属于非编码RNA,可以通过转录后基因沉默调控基因表达,并参与表观遗传重编程。它们是细胞外囊泡(EVs)中研究较多的信号成分之一。
脂肪组织来源细胞外囊泡(EVs)及其携带的 miRNA 可以通过膜蛋白依赖的方式进入大脑,在肥胖且存在胰岛素抵抗的小鼠中与认知变化相关。在线虫中,miRNA 可以通过 EVs 在不同组织之间运输,并表现出组织特异性的年龄变化。小鼠全身 ncRNA 图谱也发现,随着年龄增长,一组 miRNA 广泛失调,它们可能通过血浆因子和 EVs 参与全身衰老调节。
编辑
RNA概念带来了什么新视角?
下丘脑神经干细胞释放的 miRNA 与衰老速度有关;而年轻来源 EVs 中的 miRNA 可能通过刺激 PGC-1α、增强线粒体能量代谢,缓解部分年龄相关功能障碍。
对于检测而言,miRNA 或其他 RNA 信号的变化很有吸引力,但它们高度依赖样本类型、提取方法、测序平台、年龄、药物和生活方式。单个 miRNA 的升降通常不能脱离整体背景解释,也不能直接作为健康寿命的结论。
线粒体压力:细胞器也会“跨组织报警”
一个组织的线粒体压力如何影响其他组织?
器官间通信的一个新方向,是把细胞器本身纳入通信网络。在研究中,神经元线粒体受到活性氧、代谢副产物等因素造成的压力后,可以触发肠道的线粒体未折叠蛋白反应(UPRMT),帮助恢复蛋白质正确折叠并清除受损蛋白。
线粒体运输可能成为新的通信路径
生殖系线粒体还可以通过神经元整合组织间的线粒体压力,调节脂质代谢,进而在外周组织激活 UPRMT,帮助维持整体健康和寿命。具体由哪一种分子承担跨组织信使角色,目前仍需进一步确定。
此外,微囊泡、凋亡小体、迁移体和 exopher 等大型细胞外结构,可能携带完整或受损的线粒体,为线粒体运输和器官间通信提供新的可能。随着细胞类型特异性的分泌组分析技术发展,研究者有望更准确地追踪“哪类细胞释放了什么”,并在血液中识别潜在的器官间信号。
从“血液里有什么”追溯“谁释放了什么”?
器官间通信之所以难研究,关键在于血液中的蛋白和核酸来自许多组织,单纯测量“血液里有什么”很难判断来源。
有研究介绍了一类接近“分泌物追踪器”的工具:利用 BioID 或 TurboID 等邻近标记酶,在特定细胞的内质网或分泌通路附近给新合成、即将被释放的蛋白加上生物素标签,再从血浆中富集这些标签化蛋白,结合液相色谱—串联质谱进行鉴定。
找到候选信号之后,还要验证什么?
还可以将 TurboID 的表达限定在特定 Cre 阳性的细胞,从而在体内建立“细胞类型—分泌蛋白—循环信号”的对应关系。BirA*G3 小鼠则提供另一种遗传学标记策略,可在不依赖病毒转导的情况下,特异性标记经内质网运输的蛋白。借助这些工具,研究者得以解析在运动、衰老或疾病状态下,究竟哪些细胞改变了分泌谱。
不过,血液中被标记的蛋白未必都是器官间通信的关键效应分子,还需进一步结合受体鉴定、组织定位、动态变化及功能干预来验证。工具的作用在于帮助筛选“候选信号”,但不能替代机制层面的验证,直接将候选分子当作诊断指标或治疗靶点。
外周器官如何把状态“上传”到大脑?
器官之间的通信既有体液通路,也有神经通路。背根神经节中的体感神经元,以及颈静脉和结节神经节中的迷走感觉神经元,可以感知外周器官微环境变化,再把信息上传至大脑。
下丘脑收到激素、细胞因子和感觉输入后,再通过自主神经系统把调节信号发送回外周。
下丘脑如何把感觉信号变成代谢调节?
与感觉相关的神经元还能影响体重和葡萄糖稳态
一组原本与疼痛、触觉和本体感觉相关的背根神经节神经元,被发现能够调节脂肪组织和骨骼等代谢活跃器官。切除投射到白色脂肪组织的体感神经元,会改变脂肪组织功能,并引起体重和葡萄糖稳态变化。
骨骼也有一条清晰的“骨—感觉神经—下丘脑—交感神经”路径:骨细胞产生的 PGE2 激活感觉神经上的 EP4,信号进入腹内侧下丘脑核;随后,下行交感神经张力发生变化,影响骨髓间充质干细胞向成骨细胞分化。
编辑
瘦素等体液因素还可以调节下丘脑发出的自主神经刺激。当前仍不清楚体液反馈和感觉反馈如何在大脑中精确整合,但它们显然共同参与代谢稳态和行为反应。
下丘脑为何被视为衰老和长寿的高层级控制中心?
下丘脑中的SIRT1与衰老和寿命调节关系密切
代谢稳态和代谢可塑性的下降,是衰老的常见特征。2013年,两项独立研究都指出,下丘脑在哺乳动物衰老和寿命调节中具有重要作用。
下丘脑背内侧核(DMH)和外侧下丘脑(LH)中的 SIRT1,可以延缓小鼠衰老并延长寿命;抑制下丘脑中基底部(MBH)神经元的 NF-κB 活性也能延长小鼠寿命,而激活它则会缩短寿命。
下丘脑信号失衡与衰老代谢
下丘脑 mTORC2 信号缺失的小鼠可出现活动减少、脂肪设定点升高、易因饮食而肥胖,且老年期虚弱加重、总体生存期缩短。DMH 中 SIRT1 的下游靶标 Prdm13 参与调节白色脂肪分解与睡眠—觉醒节律;Prdm13 缺失则导致睡眠片段化、脂肪堆积和活动减少等年龄相关表型。
此外,下丘脑还调控激素分泌。随年龄增长,GnRH 分泌受损,垂体黄体生成素下降,下丘脑神经干细胞也减少。下丘脑慢性炎症同样可能损害代谢并促进衰老;单细胞 RNA 测序显示,年龄相关炎症信号在小胶质细胞和巨噬细胞中逐渐增强。
下丘脑—脂肪组织神经体液反馈环
近年来备受关注的一项发现是下丘脑与白色脂肪组织之间存在神经—体液反馈回路。DMH 中 Ppp1r17 神经元可通过交感神经调控白色脂肪组织;随年龄增长,这类 DMH^Ppp1r17 神经元活性下降,导致体力活动减少、脂肪分解减弱,并降低脂肪组织分泌 eNAMPT。遗传学或化学遗传学激活这些神经元,能在老年小鼠中改善部分年龄相关功能衰退,延缓衰老并延长寿命。
器官间通信的神经元与体液层面的整合
编辑
doi: 10.1016/j.tem.2024.11.013.
同时,eNAMPT-EVs 还能促进 DMH 的 NAD+ 合成。研究者据此提出:DMH^Ppp1r17 神经元与脂肪组织可能构成关键反馈环——下丘脑经交感神经发出信号,脂肪组织释放含 eNAMPT 的 EVs,而 EVs 进一步反馈调节下丘脑局部代谢。
该发现颇具意义,但目前主要基于动物研究,尚难直接转化为人类检测或治疗方案。
肠道及其微生物群应当被放在一个重要位置。肠道不仅负责消化吸收,也会产生或改造胆汁酸、短链脂肪酸等代谢物;这些分子能够影响肠道屏障、免疫反应、肝脏代谢以及神经系统。
肠道菌群检测可覆盖菌群构成、多样性、差异菌群、代谢通路预测、疾病风险及营养饮食分析等内容;宏基因组还能进一步关注基因构成、毒力基因和抗生素耐药基因。
肠道是器官间交流的重要枢纽。肠道菌群及其代谢产物参与其中,能够通过代谢、免疫和神经等通路,连接、转化,并在一定条件下放大或减弱器官之间的信号传递。它们既可能影响其他器官的功能,也会随着宿主生理状态的改变而变化,使肠道成为观察多器官相互作用的重要窗口。
谷禾健康也正在构建基于多组学的健康状态轴的分析模型,从不同维度全面反映涵盖炎症、免疫、代谢和衰老以及各个器官的健康轴状态。沿着这一思路,肠道菌群检测的价值不仅在于了解肠道本身,也在于为理解器官之间的“对话”提供一个切入点,为后续的健康评估、针对性检查和长期跟踪提供参考。
编辑
<来源:谷禾健康数据库>
器官间通信把代谢和衰老从“单器官问题”重新放回全身网络中。脂肪组织释放的因子、骨骼肌运动后的肌因子、骨骼分泌的骨钙素、细胞外囊泡携带的微小RNA、血液中的代谢物、衰老细胞释放的衰老相关分泌表型,以及线粒体压力引发的远程反应,共同构成了一个持续更新的信号系统。下丘脑则把这些体液和神经信息整合起来,协调能量平衡、激素、睡眠、运动、骨代谢和衰老相关过程。
这套系统的核心不是某一个“长寿分子”,而是通信是否仍然准确、灵活、具有反馈能力。随着年龄增长,保护性信号减少、慢性炎症增加、神经整合能力下降,器官之间的“对话”可能逐渐失真。未来的研究需要回答:器官间通信的衰退从哪里开始?是否存在决定寿命的特定下丘脑神经元群?下丘脑—脂肪、下丘脑—骨骼肌等不同轴线如何彼此协作?
对于普通人而言,建立“长期、系统、可验证”的健康观察方式:保持规律运动和稳定睡眠,关注饮食结构与代谢指标,必要时在专业指导下进行肠道菌群或其他检测,并把结果放回整个身体的生理背景中理解。
当我们开始关注器官如何彼此影响,健康管理也会从“哪里坏了修哪里”走向“如何让整个系统保持韧性”。这或许正是器官间通信研究带给健康衰老领域最重要的启发。
注:本账号发表的内容仅是用于信息的分享,在采取任何预防、治疗措施之前,请先咨询临床医生。
主要参考文献
Tokizane K, Imai SI. Inter-organ communication is a critical machinery to regulate metabolism and aging. Trends Endocrinol Metab. 2025 Aug;36(8):756-766.
Vitale G et al. (2019) ROLE of IGF-1 System in the Modulation of Longevity: Controversies and New Insights From a Centenarians’ Perspective. Front Endocrinol (Lausanne) 10, 27. 10.3389/fendo.2019.00027
Papadopoli D et al. (2019) mTOR as a central regulator of lifespan and aging. F1000Res 8. 10.12688/f1000research.17196.1
López-Otín C et al. (2023) Hallmarks of aging: An expanding universe. Cell 186, 243–278. 10.1016/j.cell.2022.11.001
Tokizane K et al. (2024) DMH(Ppp1r17) neurons regulate aging and lifespan in mice through hypothalamic-adipose inter-tissue communication. Cell Metab. 10.1016/j.cmet.2023.12.011
Savini M et al. (2022) Lysosome lipid signalling from the periphery to neurons regulates longevity. Nat Cell Biol 24, 906–916. 10.1038/s41556-022-00926-8
Bany Bakar R et al. (2023) The intestine as an endocrine organ and the role of gut hormones in metabolic regulation. Nat Rev Gastroenterol Hepatol 20, 784–796. 10.1038/s41575-023-00830-y
Zhou R et al. (2021) Endocrine role of bone in the regulation of energy metabolism. Bone Res 9, 25. 10.1038/s41413-021-00142-4
Yoshida M et al. (2019) Extracellular Vesicle-Contained eNAMPT Delays Aging and Extends Lifespan in Mice. Cell Metab 30, 329–342.e325. 10.1016/j.cmet.2019.05.015
谷禾健康
一个炎症性肠病(IBD)患者,刚确诊时,医生告诉他要注意饮食,于是他可能会经历这样一个过程:
先是开始少吃辛辣、油炸食品。
后来听说乳制品可能刺激肠道,于是戒掉牛奶。又看到有人说麸质不好,面包也不吃了。
再后来是粗粮、豆类、生冷蔬菜、水果、坚果
……
每一次腹痛、腹胀或者腹泻,都可能让一种新的食物进入“黑名单”。
编辑
这种现象并不罕见。2018 年一项针对 294 名荷兰成年 IBD 患者的调查显示:
编辑
这类数据并不能代表所有 IBD 患者,但足以说明:对许多人来说,饮食是疾病管理中最容易主动掌控的一部分。
问题也由此出现:如果某种限制能让人感觉好一点,那么限制得更多、更彻底,会不会更安全?如果症状减少了,是不是说明肠道炎症也控制住了?
科学界正在重新审视这个逻辑。
本文系统梳理了特定碳水化合物饮食(SCD)、低FODMAP、无麸质、无乳制品…这些限制性饮食常被用于应对不同的健康困扰,但它们带来的匹配获益,是否足以抵偿长期坚持所付出的营养、微生态、心理和现实成本?
本文不预设限制性饮食应当被推崇或否定,而是尝试追问:对谁有益、依据有多充分,又要付出什么代价?当明确依据有限时,我们应如何判断一种饮食限制是否值得长期坚持?
编辑
限制性饮食之所以有吸引力,很大程度上来自一个符合直觉的推理:既然某些食物可能带来症状,把它们排除以后感觉舒服了一些,那么意味着排除得更加彻底,也许效果会更好。
特定碳水化合物饮食(specific carbohydrate diet,SCD)是一个典型例子。
特定碳水化合物饮食 vs. 地中海饮食——限制更多的一方,没有明显优势
特定碳水化合物饮食(specific carbohydrate diet,SCD)是 IBD 患者中较常见的限制性饮食之一。通常限制谷物、复杂碳水化合物、多数乳制品和加工食品。
早期一些病例和观察性研究报告过症状改善,但样本量、随访时间和对照质量都有限。
编辑
2021 年,发表于《Gastroenterology》的一项DINE-CD 的多中心随机对照试验,给了研究者一个很直接的比较机会:SCD与地中海饮食,谁对轻中度症状的成年克罗恩病患者更有帮助?
研究纳入有轻中度症状的成年克罗恩病患者,194 人被随机分配到 SCD 或地中海饮食组,191 人进入有效性分析。前6 周由研究方提供符合方案的餐食和零食,之后患者自行执行饮食。
第 6 周,两组差异没有统计学意义。结果如下:
编辑
也就是说,在这组轻中度症状的成年人中,限制明显更多的SCD,并没有因为“管得更严”而获得更好的症状缓解或炎症指标应答。
无麸质、无乳制品——有适应证时有价值,长期坚持缺少依据
无麸质和无乳制品饮食也需要区分适应证。
如果 IBD 患者同时存在乳糜泻——严格无麸质饮食当然是必要治疗;
如果明确有乳糖不耐受——减少乳糖摄入也可能明显改善腹胀、腹泻等症状。
到了没有这些适应证的IBD患者身上,证据就弱得多。
目前没有高质量随机对照试验证明,没有乳糜泻的IBD患者通过长期戒除麸质可以改善炎症结局。无麸质饮食还可能降低膳食纤维、叶酸、维生素B12、维生素D、铁和钙等营养素的摄入,同时增加饮食成本。
乳制品也有类似情况
两项规模较小的UC维持期研究共纳入77名患者,12个月时,无奶饮食组临床复发率为59%,对照组为68%,RR=0.83,95%CI 0.60~1.15,差异没有达到统计学显著;内镜和组织学复发的数据也不足以支持明确结论。
与此同时,长期排除乳制品还需要考虑钙和维生素D不足。
因此,对于长期忌口的患者,可以定期问问自己:这项限制当初为什么开始,今天还需要吗?
当严格程度增加,却没有获得与之相匹配的疾病获益,长期越来越窄的饮食范围,会不会同时付出其他代价?
编辑
限制性饮食当然有它的临床位置。疾病活动期、存在梗阻风险、明确食物不耐受,饮食调整本身可以是治疗和症状管理的一部分。
需要权衡的是,当一种长期限制没有显示出与其严格程度相匹配的疾病获益时,那么营养、心理、微生态、成本和可执行性代价就应被重视。
营养代价 | 过度忌口,加重营养风险
IBD 患者本身就容易出现营养问题。慢性炎症、食欲下降、腹泻和吸收障碍,都可能影响营养摄入和吸收,药物及既往手术也可能增加这一风险。
如果此时又长期排除多个食物类别,问题就容易叠加。长期忌口、食物种类不断减少,则可能进一步造成能量和蛋白质摄入不足,铁、维生素 B12、叶酸、维生素 D、锌和钙等营养素缺乏的风险增加。
看似正常的体重,也可能出现营养问题
即使体重没有明显下降,患者仍可能出现肌肉量减少,甚至发展为肌少症。研究指出,IBD 患者的肌少症与住院、术后并发症、生物制剂治疗反应较差及生活质量下降有关。
编辑
对于儿童和青少年,具有更高的营养需求,营养不足还可能影响生长发育、青春期发育延迟、骨矿化不足等。
因此,饮食管理里不是说只盯着“这顿饭有没有让我拉肚子”,也要看长期能量、蛋白质和微量营养素有没有跟上。
AGA 2024年临床实践更新提出,IBD患者需要定期接受营养不良筛查,并关注维生素D和铁;对于广泛回肠病变或既往回肠手术患者,还应特别关注维生素B12。
微生态代价 | 过度忌口,可能改变肠道菌群
长期限制还有一个容易被忽视的矛盾:很多人减少食物种类,是为了保护肠道,但肠道微生物同样依赖我们每天吃进去的食物。全谷物、豆类、蔬菜、水果中的多种膳食纤维和可发酵成分,可被肠道微生物利用,并生成包括乙酸、丙酸、丁酸在内的短链脂肪酸。丁酸被认为参与肠上皮屏障完整性和免疫调节。
研究指出,饮食多样性与肠道微生物群的多样性和韧性有关;长期减少可发酵纤维,可能伴随部分有益菌减少和短链脂肪酸生成下降。
因此,食物越来越单一带来的变化,可能不只表现为少摄入了几种维生素。长期饮食结构怎样改变肠道生态,也逐渐成为IBD营养研究的重要方向。
心理代价 | 焦虑:从谨慎进食到害怕吃饭
当食物不断被分成安全和危险,正常进食很容易变成持续的风险评估。
今天腹痛,就开始回想中午是不是吃错了什么;
明天排便次数增加,又从菜单里删掉一样。
随着这种模式不断重复,可选择的食物越来越少,
即使疾病已经稳定,患者也可能仍然不敢尝试过去停掉的食物。
这种模式在部分患者中会发展为明显的食物焦虑,甚至达到回避/限制性食物摄入障碍(avoidant/restrictive food intake disorder,ARFID)的标准。
注:回避/限制性食物摄入障碍是一种进食障碍。患者可能因为害怕进食后的不良反应、对食物的气味或质地敏感,或者缺乏进食兴趣,长期回避某些食物或限制摄入量,进而出现营养不足、体重下降或社交功能受损。与神经性厌食症不同,ARFID 通常与追求瘦身或对体重、体形的不满无关。
2025 年一项多中心研究纳入 325 名 IBD 患者,17.8% 符合 ARFID 标准;
即便只看没有客观活动性炎症的患者,仍有 16.3% 符合标准。
对于这部分疾病处于非活动状态的患者,胃肠道相关焦虑是显著预测因素。
一项包括国内四家三甲医院的消化内科门诊进行的横断面研究,共有 483 名患有炎症性肠病的患者完成了问卷调查。其中,20.3%的患者符合急性回避障碍的临床标准。急性回避障碍的平均得分为 21.9 分。
编辑
多变量逻辑回归分析结果显示,以下因素与急性回避障碍的发生有显著关联:患有克罗恩病的患者(比值比为 0.483,95%置信区间:0.280-0.835;p=0.009);处于活动性疾病状态的患者(比值比为 0.220,95%置信区间:0.123-0.392;p<0.001);具有与症状控制相关的饮食观念的患者(比值比为 2.431,95%置信区间:1.299-4.548;p=0.005);以及有特定饮食史的患者(比值比为 27.158,95%置信区间:3.679-200.456;p=0.001)。
回避/限制性食物摄入障碍(ARFID)不是以减重为目的的节食
患者可能因为害怕腹痛、腹泻等进食后果,对食物气味或质地敏感,或者逐渐缺乏进食兴趣,持续回避食物或限制摄入,最后影响营养、体重和社会功能。
当限制不断扩大、即使病情稳定也不敢重新引入食物时,饮食管理已经不仅是营养问题,也可能成为心理和生活质量问题。
执行代价 | 方案越复杂,现实中的坚持越困难
严格饮食还会带来很实际的负担:购买特殊食材、阅读配料表、自己准备餐食、减少外食、额外使用营养补充剂,以及更多的时间和经济成本。
临床试验中的退出率,可以部分反映这种负担。
提供预制餐 V.S. 自行备餐
提供预制餐:2026年一项对62项IBD饮食试验、共3523名参与者进行的Meta研究显示,总体未完成率约为16%。
自行备餐:其中最显著的例子是 PRODUCE 试验,在该试验中,特定碳水化合物饮食组44%的参与者退出。
编辑
研究者还注意到,由研究团队直接提供餐食的试验,完成情况往往好于需要参与者自行采购和准备食物的试验。换句话说,进入真实生活以后,复杂饮食的执行难度可能还会进一步增加。
当这些问题被放到一起,IBD长期饮食管理的方向也开始发生变化。
编辑
如果长期饮食限制既没有稳定显示出更好的疾病控制,又可能伴随营养、微生态、心理和执行方面的成本,那么研究自然会开始寻找另一种路径:在疾病条件允许的情况下,尽量保留更完整、更丰富、更容易长期维持的饮食结构。
近年来被讨论较多的地中海饮食,就是这种思路的代表之一。
地中海饮食:一种更丰富的长期饮食框架
地中海饮食强调摄入蔬菜、水果、全谷物、豆类、坚果、橄榄油、鱼类及其他优质蛋白,同时减少红肉、加工肉类和超加工食品。
这种饮食模式的特点不在某一种超级食物,而在整体组合:包含较丰富的膳食纤维、不饱和脂肪酸及植物来源的生物活性成分,也为肠道微生物提供了多种可利用的膳食底物。
编辑
在针对 IBD 研究过的包容性饮食模式中,当前各学会推荐地中海饮食作为大多数患者优选的饮食框架。
不过,支持性证据主要来自观察性研究,而随机对照试验数据仍然有限。
一些研究已经证明,坚持地中海饮食与克罗恩病和溃疡性结肠炎患者的疾病活动指数、炎症生物标志物和生活质量改善之间存在关联。
前文介绍的 DINE-CD 试验,也为这一方向提供了参考。在具有轻中度症状的成年克罗恩病患者中,地中海饮食与限制更严格的 SCD 在第6周取得了相近的症状缓解率,两组的炎症指标应答率也未见显著差异。
这项研究提示,长期饮食方案的选择可以同时考虑营养结构、食物丰富程度及患者的执行能力。对于病情稳定、没有特殊饮食禁忌的患者,地中海饮食提供了一种较容易融入日常生活的基础框架。
相关研究为包容性饮食提供了生物学依据,长期疾病获益仍有待更多临床试验进一步明确。
专业指南更加重视营养充分与长期可持续
近年来,专业组织相继更新 IBD 饮食管理建议,将营养状态、疾病活动度及患者的实际生活需求纳入饮食方案的选择。
各组织的关注重点有所不同,但整体上都强调营养充分、个体化管理,以及饮食干预与规范医学治疗相结合。
中华医学会消化病学分会
2026年,《中华医学会消化病学分会炎症性肠病学组》发布了《炎症性肠病生活方式管理中国专家共识》。
1、IBD患者普遍存在膳食纤维、维生素、矿物质及其他营养素摄入不足的问题,导致营养缺乏发生率较高。多种营养素缺乏与疾病活动度密切相关。患者应在医师指导下加强饮食管理并适时补充必需营养素。(共识水平:100.0%;证据质量:中等质量)
2、饮食或补充剂中增加膳食纤维对非狭窄型克罗恩病患者具有良好安全性,而合并症状性肠道狭窄的克罗恩病患者应严格限制膳食纤维的摄入。(共识水平:96.0%;证据质量:中等质量)
3、在充分保障患者每日营养需求的前提下,临床医师应结合IBD患者的肠道耐受情况,参考一般人群的健康膳食指南,对脂肪、蛋白质,以及特定种类的肉类、蔬菜和水果的摄入进行个体化调整,以实现营养均衡和症状控制的双重目标。
4、超加工食品的摄入可能增加IBD患者的疾病活动度和复发风险,并与手术等不良结局相关,建议患者在日常生活中减少此类食品的摄入。(共识水平:100.0%;证据质量:中等质量)
5、鉴于我国人群乳糖不耐受比例较高,建议对乳制品不耐受或回避的IBD患者增加其他来源的蛋白质和营养素摄入,以保证其营养需求。
6、不建议IBD患者在无明确依据的情况下减少米、面等精制谷物主食的摄入。如有调整饮食结构的需求,可在专业人士指导下适度增加全谷物的摄入。
7、以高摄入超加工食品、红肉和动物脂肪,以及低摄入蔬菜与水果为特征的西方化饮食与IBD患者的不良预后密切相关。在日常饮食管理中,患者可参考地中海饮食(高蔬菜水果、全谷物、豆类、鱼类及不饱和脂肪摄入,限制红肉和甜食摄入),含可被发酵的低聚糖、双糖、单糖和多聚糖的食物(fermentableoligosaccharides, dissaccharides,monosaccharides andpolyol;FODMAP)饮食,以及江南饮食等健康饮食模式进行食物选择。这些健康饮食模式的共同理念在于增加水果、蔬菜、全谷物、豆类、鱼类、坚果与种子类食物的摄入,同时限制红肉、加工肉类、高糖食品和饮料的摄入。(共识水平:92.0%;证据质量:高质量)
——以上内容引自:《中华医学会消化病学分会炎症性肠病学组》
国外权威指南也有相关描述:
美国胃肠病协会 (AGA)
2024年临床实践更新建议,在没有禁忌的情况下,多数 IBD 患者可以将地中海饮食作为长期健康饮食的基础。
对于症状明显的疾病活动期患者,可以短期采用低渣、低纤维饮食,并根据病情逐步恢复日常饮食。AGA 对长期严格限制性饮食持谨慎态度,包括长期维持低 FODMAP 饮食。
此外,减少红肉和加工肉类摄入可能有助于降低溃疡性结肠炎的发作风险,但在克罗恩病中尚未观察到同样明确的复发预防效果。
欧洲克罗恩病和结肠炎组织 (ECCO)
2025年饮食管理共识强调保障充足的营养摄入,避免缺乏明确适应证的长期限制。对于活动期或存在肠梗阻症状的患者,可以根据临床情况短期调整饮食。
ECCO 还建议尽早引入具备 IBD 管理经验的营养师,协助评估营养状态、制定个体化方案,并提高长期饮食管理的可执行性。
国际炎症性肠病研究组织 (IOIBD)
IOIBD承认,饮食干预可能在症状管理中发挥作用,或作为部分患者的辅助治疗,但不要将限制性饮食作为单一治疗方案。该组织特别强调在进行饮食干预时,要进行共同决策、密切监测营养缺乏症,并让多学科护理团队参与。
美国胃肠病学会 (ACG)
对克罗恩病和溃疡性结肠炎的相关建议也强调饮食的辅助作用。对于中重度活动性 IBD,疾病控制仍需要有效的药物治疗;部分轻症患者或有特定症状的患者,可以在专业指导下进行短期饮食调整,并获得相应的营养支持。
编辑
doi.org/10.1007/s11894-026-01047-0
综合这些建议,长期饮食管理更加重视营养充分、饮食多样性和患者的实际耐受情况。地中海饮食因其整体健康获益、食物选择相对丰富及长期可执行性,成为多数 IBD 患者可以考虑的基础饮食模式。
对于有明确临床需要的患者,针对性限制和治疗性饮食仍然具有相应的应用价值。
全肠内营养、克罗恩病排除饮食:限制可以有价值,但要有目标、有阶段
EEN:在克罗恩病中具有明确治疗地位,儿童证据尤其充分
全肠内营养(Exclusive Enteral Nutrition,EEN)在克罗恩病,尤其儿童克罗恩病中具有明确治疗地位。在规定疗程内,患者主要通过营养配方获得完整营养,以缓解疾病。
部分成年患者也可在专业指导下采用 EEN,具体应用需要结合疾病状态、营养情况及治疗目标。
CDED:“限制”也可以是结构化、阶段性的治疗
克罗恩病排除饮食(Crohn’s Disease Exclusion Diet,CDED)是一种分阶段实施的治疗性饮食,通常与部分肠内营养(Partial Enteral Nutrition,PEN)联合使用。
它并不是让患者无限期地排除越来越多食物,而是按照治疗目标规定不同阶段的饮食内容,并安排后续过渡。
2019年的一项随机对照试验纳入78名轻中度克罗恩病患儿。40人接受CDED联合PEN,38人接受EEN。CDED+PEN组的饮食耐受率达到97.5%,EEN组为73.6%,P=0.002。
第6周,采用更严格缓解标准时,两组无激素缓解率分别为75%和59%,差异没有达到统计学显著。
到了第12周,持续接受CDED+PEN的患者中75.6%维持无激素缓解,而EEN后转为自由饮食联合PEN的对照组为45.1%,P=0.01。
这类治疗性饮食有一个共同点:适应证、疗程和后续调整都比较明确,通常由医疗和营养专业人员共同管理。研究也强调,限制性饮食应有明确目标和时间边界,并安排结构化的食物重新引入。
限制要有开始,也要有退出机制。
这也给“动态扩容”划出了边界:病情需要时可以限制,条件改变后,就该重新评估那些曾经被停掉的食物。那么,什么时候可以加回来?吃完不舒服又该怎么看?
编辑
IBD 患者在不同疾病阶段的饮食需求存在明显差异。
同一种食物,对不同患者可能不同;对同一个患者,在活动期、缓解期、术后恢复期,答案也可能发生变化。有没有明显狭窄、一次吃多少、食物是生的还是充分煮熟、个人有没有乳糖或其他食物不耐受,都会影响实际反应。
因此,与其不断追问“这个东西到底能不能吃”,更有效的问题是:
以现在的疾病状态,这个食物是否适合?
如果需要暂缓,原因是什么?什么时候再评估?
吃完不舒服,需要重视,但不当成炎症复发
腹胀、腹痛、排便次数增多、大便变稀,当然都值得关注。但IBD中的胃肠道症状与炎症活动并不完全同步。
有些食物进入肠道以后,因为发酵、渗透作用、食物质地或对胃肠动力的影响,可以造成产气、腹胀和排便改变,这些症状并不意味着肠黏膜炎症必然同步加重。反过来,一个人几乎没有症状,也不能据此确认肠道中完全不存在炎症。
低FODMAP研究非常适合说明这个区别
低 FODMAP 饮食最初用于肠易激综合征,主要减少容易发酵、吸收不完全的短链碳水化合物。
它在 IBD 中最有价值的场景,通常是疾病处于缓解期,但患者仍然存在腹胀、腹痛、腹泻等 IBS 样症状。
编辑
2020 年一项随机对照试验纳入 52 名处于静止期、但仍有持续胃肠道症状的克罗恩病或溃疡性结肠炎患者。27 人接受低 FODMAP 饮食建议,25 人接受对照饮食建议,干预 4 周。低 FODMAP 组 14/27(52%)报告胃肠道症状得到充分缓解,对照组为 4/25(16%)(P=0.007)。
症状上的差异很明显,但研究并没有观察到相应的抗炎变化。粪便钙卫蛋白、CRP等指标没有出现一致改善。
2025年的Meta分析汇总5项随机对照试验、共224名患者,也发现低FODMAP可以降低整体IBS样症状严重程度,SMD=-0.56,95%CI -0.90~-0.23,P=0.0009;粪便钙卫蛋白则没有显著差异,SMD=-0.20,P=0.17,而且整体证据确定性仍然有限。
编辑
随机研究还观察到长期严格低FODMAP可能减少双歧杆菌和普拉梭菌,并影响丁酸生成。
因此,目前低FODMAP饮食更适合在有IBS样症状重叠的部分IBD患者中短期使用,随后进行结构化的食物再引入。
这组研究对普通患者有一个非常实际的意义:
有时候需要调整的是量,有时候是食物形态,有时候处理的是功能性症状;如果客观炎症指标同时升高,则又属于另外一个临床问题。
看现在处在哪个阶段,再决定要不要“扩”
开始重新引入食物以前,首先需要判断当前疾病状态。
活动性炎症、IBD与IBS样症状重叠、肠道狭窄以及术后恢复,对饮食的要求差异很大。评估时除了症状,还可以结合粪便钙卫蛋白、CRP,必要时通过内镜或肠道检查了解炎症和肠道结构。
如果炎症正在明显活动,治疗炎症本身仍然是疾病管理的核心,不能因为少吃几样东西以后腹泻减少,就认为疾病已经得到控制。
如果炎症处于稳定状态,却仍有明显腹胀、腹痛和排便异常,就可以考虑是否存在IBS样功能性症状,以及低FODMAP等短期干预是否适合。
如果存在明显肠道狭窄或梗阻风险,食物质地和纤维摄入又需要单独调整。即使从长期健康角度希望增加植物性食物,也不能脱离肠道结构情况自行大量增加粗纤维。
编辑
重新引入时,一次不要改变太多
当疾病稳定、营养状态允许、又没有明确禁忌时,可以逐步尝试一些过去停掉的食物。
如果一次恢复五六种食物,第二天出现腹胀,很难知道真正的影响因素在哪里。因此,更容易观察的方法是一次尽量改变一个主要变量,从相对小的量开始,再结合食物质地和烹调方式逐步调整。
例如,一种蔬菜过去生吃容易出现明显症状,可以根据个人情况先从充分煮熟、较小份量尝试;曾经长期不吃豆类,也无需第一顿就吃很大的量。
如存在明显狭窄、既往复杂手术或其他特殊情况时,重新增加膳食纤维尤其需要医生和营养专业人员参与。
这个过程不追求“挑战食物”。主要是看这项限制今天还需不需要存在?如果不需要,我怎样把它稳妥地放回日常饮食?
观察症状、炎症、营养和微生态
重新吃回一种食物时,最容易感知的是腹胀、腹痛、排便这些变化,这些都可以记录下来。
但如果要判断这次重新引入是否合适,还需要把观察范围放宽一些,时间拉长一点。看这种反应是否反复出现,以及经过一段时间后,炎症状态、营养状态等有没有一起变化。
比如,某种食物增加以后连续几次都出现类似的腹胀,可以进一步调整摄入量、烹调方式或食物形态;
如果只是偶尔一次不舒服,之后又能够正常耐受,就没有必要急着重新把它放回“黑名单”。
——看疾病状态
除了症状记录,也可以结合粪便钙卫蛋白、C反应蛋白等炎症相关指标;医生认为有必要时,再进一步考虑内镜或影像检查。这些临床评估仍是判断疾病活动度的重要依据。
如果希望进一步了解肠道微生态,也可以把粪便菌群检测作为补充观察工具。以谷禾健康肠道菌群检测为例,样本通过粪便采集,过程相对无创;报告可提供菌群组成,以及与炎症、肠道屏障等相关的参考指标和风险评估,为理解个体的微生态状况增加指导线索。
把这些信息放在一起,更容易判断这段时间出现的腹泻、腹痛,究竟是食物耐受变化,还是疾病状态也在悄悄发生改变。
——看营养和饮食结构
除了症状和炎症相关指标,体重、肌肉量,以及铁、维生素D、维生素B12等营养指标,也值得持续关注。它们能帮助判断:随着饮食限制减少,营养摄入是否更充足,整体饮食结构是否有所改善。
编辑
例如,一位长期不吃豆类、全谷物和多种蔬菜的患者,在病情稳定后逐步增加这些食物,观察的就不只是“吃完有没有腹胀”。还可以结合粪便钙卫蛋白、C反应蛋白等临床指标,关注炎症状态是否稳定。
同时评估膳食纤维摄入和相关营养指标的变化。如果希望进一步了解饮食调整伴随的微生态变化,也可以参考菌群多样性、短链脂肪酸相关评估及相关菌群等指标。
这些信息需要放在一起理解:饮食变化、症状、营养状态、近期用药和疾病活动度都可能影响肠道微生态。菌群检测可以补充一组个体化的微生态参考信息,帮助患者和医生观察饮食结构变化与菌群特征之间是否出现值得关注的趋势。
编辑
饮食调整开始时,可以先留下自己的基线菌群状态。几个月后再复测,与自己的基线做纵向比较,就能看到随着食物种类逐步增加,菌群多样性、核心菌群、IBD风险评估,以及膳食纤维、短链脂肪酸生成能力等指标在发生的变化,通过这样不断持续记录和对比,不仅能清晰地看到哪些饮食调整对自己的菌群产生了积极影响,更能发现哪些食物可能引发了肠道不适,从而灵活地进行针对性地调整。
编辑
对于炎症性肠病(IBD)患者,限制饮食有明确适用场景,例如确诊乳糜泻、食物过敏,或在专业指导下进行有期限、有目标的饮食干预。需要重新审视的,是那些长期沿用、依据不清,或已经让饮食种类越来越少、营养摄入和生活质量受到影响的限制。“可能不耐受”不等于必须终身忌口;但重新尝试,也应建立在病情和个人风险经过评估的基础上。
如果考虑重新引入某种食物,第一步不是直接试吃,而是先弄清楚限制它的原因:曾经出现的是过敏反应、稳定重复的胃肠道症状,还是在疾病发作期偶然出现的不适?目前疾病是否稳定?是否有肠道狭窄、梗阻风险、吞咽困难等会影响进食安全的情况?既往是否有严重过敏反应?同时也要盘点体重变化、实际摄入量,以及铁、维生素B12、维生素D等营养风险。
若有狭窄或梗阻风险、严重过敏史、明显营养不良或病情活动,不宜自行进行食物挑战。
有一个比较安全可以采用一个简单、可复盘的步骤:一次只调整一种食物,从少量、容易控制的形式开始;尽量保持其他饮食和用药不变;记录食物、份量、烹调方式、症状及发生时间。若相似反应在多次摄入后重复出现,再讨论是否需要改变份量或做法、暂缓尝试,或进一步评估。若只是偶发一次不适,不必立刻把食物永久列入禁忌(除一些诱发荨麻疹、呼吸困难、喉头肿胀等严重过敏反应的食物)。
判断结果时,也不要把所有症状都归因于食物。腹痛、腹泻可能与食物耐受、感染、药物或IBD活动等多种因素有关。若症状持续或加重,应由医生结合病程和具体表现,决定是否需要粪便钙卫蛋白、血液检查、内镜和肠道菌群评估;食物过敏评估则应基于相应的病史和临床怀疑,而不是仅凭不适就进行广泛筛查。与此同时,定期关注体重、肌肉量、饮食摄入和有指征的营养指标,避免在控制症状的过程中忽略营养不足和菌群的平衡以及多样性等。
注:本文仅用于IBD和营养相关知识分享,不替代针对个体患者的医疗和营养建议。IBD活动期、肠道狭窄、术后、儿童青少年及存在明显营养不良风险的人群,饮食调整尤其需要结合消化科医生及专业营养师进行个体化评估。
相关阅读:
炎症性肠病(IBD)发病机制、风险因素、临床前阶段与治疗窗口
炎症性肠病中宿主与微生物群的相互作用
“灭火指南”——通过早期营养干预改善慢性低度炎症
从肠道菌群到炎症因子:读懂疾病的预警信号
炎症——始于不平衡,归于免疫:理解和管理慢性疾病
肠道病原体感染定植的三个关键角色——炎症、营养与共生菌群
肠道菌群失调与炎症性肠病的关联
全面解析各类营养物质在炎症中的作用
主要参考文献
向上滑动阅览
Cunha B, Alter A, Berschback M, Park S, Gold S, Schneider Y. Rethinking Restrictive Diets in IBD: Toward an Inclusion-Focused Nutritional Paradigm. Curr Gastroenterol Rep. 2026 Sep 19;28(1):31.
Hashash JG, Elkins J, Lewis JD, Binion DG. AGA Clinical Practice Update on Diet and Nutritional Therapies in Patients With Inflammatory Bowel Disease: Expert Review. Gastroenterology. 2024 Mar;166(3):521-532.
Tu W, Li Y, Yin T, Zhang S, Zhang P, Xu G. Association between avoidant/restrictive food intake disorder risk, dietary attitudes and behaviors among Chinese patients with inflammatory bowel disease: a cross-sectional study. BMC Gastroenterol. 2025 Mar 6;25(1):144.
Godny L, Pfeffer-Gik T, Elial-Fatal S, Shakhman S, Dotan I. Nutritional composition of diets for inducing and maintaining remission in inflammatory bowel diseases: from bedside to plate. Curr Opin Pharmacol. 2026 Feb;86:102587.
Ville A, McRae R, Nomchong J, Reidlinger DP, Davidson AR, Staudacher HM, Albarqouni L. Effects of a Low FODMAP Diet in Inflammatory Bowel Disease and Patient Experiences: A Mixed Methods Systematic Literature Review and Meta-Analysis. J Hum Nutr Diet. 2025 Aug;38(4):e70106.
Gregersen L, Moos C, Hikmat Z, Fogh Rasmussen N, Petersen SR, Heitmann BL, Halldórsson ÞI, Andersen V, Christensen R. Study Design Complexity and Participant Completion in Dietary Trials for Inflammatory Bowel Disease: A Systematic Review and Metaresearch Study. Adv Nutr. 2026 Apr;17(4):100614.
谷禾健康
在日常肠道菌群检测中,我们注意到一个值得讨论的现象:进入夏季以后,样本中沙门氏菌的检出有所增加。
看到报告上的沙门氏菌时,很多人的第一反应往往是:我是不是感染了?为什么没有腹泻、发热,也会检出?需要用药吗?…
沙门氏菌进入消化道后,可能只是短暂经过,也可能在肠道中停留;只有部分细菌能够进一步靠近并黏附肠上皮,启动侵袭过程或引起宿主免疫反应,这时才更接近感染。
而感染是否进一步发展为腹泻、腹痛、发热等症状,还受到细菌数量和菌株特征、肠道屏障、原有菌群状态以及个人免疫功能等多种因素影响。因此,同样是检出沙门氏菌,不同人的实际意义可能并不相同。
本文将带大家沿着沙门氏菌进入人体后的路径,了解它需要闯过哪些屏障,肠道菌群如何阻止它留下,它又怎样侵入上皮、利用炎症环境并躲避宿主防御。最后,我们再回到检测报告本身,讨论应该如何理解和应对沙门氏菌的检出。
什么是沙门氏菌?
沙门氏菌是一种杆状、革兰氏阴性、有鞭毛、兼性厌氧的细菌,属于肠杆菌目。沙门氏菌属包含 约 2600 多种血清型(这些血清型通过 Kauffman–White 分型方案进行鉴定)。
沙门氏菌的显微照片
编辑
来源:Sherris医学微生物学(第4版),麦格劳-希尔出版社(2003)
沙门氏菌并不是一种单一细菌,而是包含大量血清型的细菌类群。根据人类沙门氏菌病的临床表现,可以分为伤寒型沙门氏菌和非伤寒沙门氏菌。
沙门氏菌分类概述
编辑
doi.org/10.1080/1040841X.2026.2668055
注:几乎所有沙门氏菌都能够在其致病性和毒力武器的帮助下感染、繁殖和在人体宿主细胞中存活,这使其成为致命且重要的公共卫生病原体。
其中,肠炎沙门氏菌和鼠伤寒沙门氏菌是较常见的非伤寒沙门氏菌。非伤寒沙门氏菌是一种常见的肠道细菌感染,表现为腹泻、呕吐、腹痛以及其他临床体征 (WHO, 2018)。
鼠伤寒沙门氏菌血清型可以感染多种动物,例如牛、羊、山羊、猪、马等。
编辑
本文后文讨论的食物暴露、肠道菌群竞争、定植、侵袭和炎症机制,主要针对非伤寒沙门氏菌,尤其是鼠伤寒沙门氏菌和肠炎沙门氏菌。
编辑
<来源:谷禾肠道菌群检测数据库>
检出 = 感染 ?
在粪便样本中检出沙门氏菌,是否就代表已经感染?
答案是:不一定。
二者之间并不能直接画等号。
从接触沙门氏菌到真正发病,中间可能经历几个不同状态。
进入消化道,不一定能留下
沙门氏菌通常通过受到污染的食物、水、动物或环境进入人体。
但吃进去只代表发生了暴露。细菌到达胃肠道后,还可能被胃酸、胆汁、肠道运动和原有肠道菌群清除,最终随粪便排出。
因此,即使多人接触了同一批受到污染的食物,最后的检测结果和身体反应也可能不同。
编辑
检出可能只是短暂经过
一部分沙门氏菌可能只是随食物短暂通过消化道,没有在肠道中建立相对稳定的生存状态,就已经被排出。
如果采样时间恰好处于这个阶段,粪便检测可能得到阳性结果。此时的阳性更接近近期曾经接触过沙门氏菌,不一定说明细菌已经在肠道中持续存在。
能够留下,也不是说已经发病
如果沙门氏菌能够获得空间和营养,并在肠道中持续存在一段时间,就可能形成携带或定植状态。
携带或定植并不一定伴随腹泻、发热等症状。人体原有肠道菌群、肠道屏障和免疫系统,可能把沙门氏菌限制在较低水平,使其暂时没有造成明显健康影响。
编辑
感染和发病,区别在哪里?
当沙门氏菌开始黏附肠上皮、侵入细胞或激活明显免疫反应时,才更接近感染的含义。
研究表明,沙门氏菌经口进入人体,耐受胃内环境,到达小肠后黏附并侵袭肠上皮,随后可能在细胞内生存,少数情况下进一步向其他组织扩散。
感染并不一定立即产生明显症状。人体可能在早期就限制细菌扩增,因此只有轻微不适,甚至没有明显感觉。
当感染进一步引起腹泻、腹痛、恶心、呕吐或发热等临床表现时,才进入发病阶段。
沙门氏菌病由沙门氏菌引起,是全球最常见的食源性疾病之一,估计每年有9380万病例和约15.5万例死亡。
在工业化国家和发展中国家,沙门氏菌病都被报告为最常见的食源性人畜共患病之一,与急性、慢性肠炎和败血症等一系列疾病综合征相关。
这是一条可能的进展路径,但不是每个人都会依次经历全部阶段。多数沙门氏菌可能在前面的屏障中被清除,只有部分能够继续定植、侵袭并引起疾病。
沙门氏菌主要通过受污染的食物、水、动物或环境进入人体。禽肉、蛋类、肉制品、乳制品、果蔬和受污染水源,都可能成为传播环节;其中,食物储存不当、加热不足、厨房交叉污染,是较常见的风险来源。相关研究也把这些食品来源和处理环节列为沙门氏菌暴露的重要途径。
注:肠炎沙门氏菌是常见的非伤寒沙门氏菌血清型之一,主要与禽类、蛋类及相关食品链有关。但暴露也可能发生在禽肉加工、厨房交叉污染、设备和环境表面污染等环节。
编辑
也就是说,夏季更容易形成有利于沙门氏菌存活、增殖和传播的生活场景。
夏季首先改变的是温度条件
较高温度会加快许多细菌的生长,而冷藏只能抑制沙门氏菌增殖,不是完全杀灭它。即使食物经历冷冻,沙门氏菌在解冻并回到适宜条件后仍可能恢复生长。
有时候,时间、温度和交叉污染同时出现。例如:
这些场景会增加食物中沙门氏菌数量上升的机会,也可能让原本只发生在生食区的污染扩散到已经加工好的食物。
动物接触也是暴露途径之一
宠物犬等动物有时可以在没有明显症状的情况下携带沙门氏菌,并通过粪便、食盆、生活环境或生食传播细菌。
研究显示,宠物犬即使没有腹泻等明显临床症状,也可能作为沙门氏菌的无症状携带者。
伊拉克一项针对140只宠物犬的调查中,25只犬(17.9%)检出沙门氏菌。
这提示:宠物没有腹泻等明显症状,也有可能携带病原菌。
对家庭而言,值得注意的是“粪便或宠物食物—手和环境表面—厨房与即食食品”这条污染链。清理排泄物、处理宠物生食、清洗食盆之后,如果没有及时洗手或清洁接触面,细菌就可能被带入食品制备区域。
编辑
因此,应重点阻断排泄物清理、宠物食物处理、食盆及接触表面清洁与厨房食品制备之间的污染链。
夏季可能增加的是接触机会,但一次暴露能否继续发展,并不只取决于吃进去了多少沙门氏菌。细菌进入消化道后,还要连续面对胃酸、胆汁、肠道运动、黏液层、肠上皮等多重屏障。
这些屏障不断减少能够继续前进的细菌数量。
只有少部分细菌成功通过这些关口,才有机会在肠道中停留、定植并进一步引起感染。
胃酸:第一轮数量筛选
沙门氏菌随食物进入胃部后,首先面对的是低pH环境。
胃酸会破坏细菌的蛋白质、细胞膜和正常代谢,大量外来微生物会在这一阶段失去活性。因此,胃部可以看作一道重要的数量筛选屏障。
沙门氏菌具有一定的酸耐受能力,能够在酸性环境中启动应激反应,调整膜结构和相关基因表达。
注:耐受胃酸只代表细菌获得了继续前进的机会,并不等于它已经开始侵入肠上皮,也不意味着感染已经建立。
编辑
研究指出,胃内酸性环境会诱导沙门氏菌表达 SPI-1(Salmonella pathogenicity island-1)编码的III型分泌系统,促进其侵入回肠派尔集合淋巴结上皮中的 M 细胞,进入后续感染过程。
也就是说,这里胃酸完成了一轮筛选:大量细菌在这里失去活性,而少数具备适应能力的沙门氏菌不仅存活下来,还可能提前进入准备攻击的状态。
胆汁和消化环境:持续的膜与代谢压力
进入小肠后,沙门氏菌还要面对胆汁、消化酶、渗透压和营养条件的变化。
胆汁具有类似去污剂的作用,能够干扰细菌细胞膜。沙门氏菌虽然具备一定的胆汁耐受和应激调节能力,但仍需要消耗能量修复损伤并维持正常功能。
因此,食物中原本存在的沙门氏菌数量,不等于最终能够到达肠道深处的数量。细菌在经过胃和小肠上段的过程中,可能已经经历多轮削减。
肠道运动:不给外来细菌无限停留的机会
肠内容物始终在向前移动。
尚未黏附、没有找到适合生态位的沙门氏菌,可能随食物残渣和粪便被排出。肠道运动因此构成一种机械性清除机制。
这也说明,短暂检出并不一定意味着沙门氏菌已经在肠道中建立了稳定关系。细菌只有在被排出之前成功靠近黏膜、获得空间和营养,才可能进一步停留。
编辑
腹泻发生时,肠道运动和液体分泌增加,可能加快病原体排出;但与此同时,也会带来水分和电解质丢失,并影响原有菌群和屏障状态。因此,腹泻既是感染表现,也可能是人体试图限制病原体的一部分反应。
黏液层:隔开细菌与上皮细胞
肠道表面覆盖着黏液。黏液由杯状细胞分泌,能够减少细菌与上皮直接接触,同时把部分抗菌物质保留在黏膜附近。沙门氏菌要进一步侵袭,必须穿过或绕过这一层物理屏障。
黏液层会不断更新,并受到饮食、菌群和炎症状态影响。黏液结构完整时,外来细菌更难接近上皮;一旦屏障受损,沙门氏菌与上皮细胞接触的机会就可能增加。
肠上皮:最后一道局部结构防线
肠上皮细胞之间通过紧密连接相互连接,形成连续屏障,把大多数微生物限制在肠腔内。
与此同时,上皮细胞并不只是被动的墙。潘氏细胞和其他上皮细胞能够分泌抗菌肽等物质,直接限制靠近黏膜的细菌。
有研究表明,黏蛋白、REG3γ等黏膜防御成分有助于减少沙门氏菌接近和穿过上皮。
只有成功接近上皮、形成稳定黏附,并进一步启动侵袭程序,沙门氏菌才可能从肠腔中的外来细菌转变为参与感染过程的病原体。
即使沙门氏菌成功到达肠道,它仍然没有进入一个空白环境。肠道中原有的微生物已经占据空间、消耗营养并塑造局部代谢条件。下一章将进一步讨论:肠道菌群怎样形成定植抗性,使沙门氏菌即使到达肠道,也未必能够真正留下来。
外来细菌进入后,必须与这些已经适应肠道环境的微生物竞争。肠道菌群通过这种整体作用限制病原体定植,称为定植抗性。
可以概括为空间占据、营养竞争、抑菌物质、代谢环境调节以及对宿主黏膜屏障的支持。
1
先占据生态位置,让外来细菌难以立足
肠道中的黏液表面、食物颗粒和上皮附近,都已经存在相对稳定的微生物群落。
这些共生菌附着在适合自己的位置,并持续利用当地资源。沙门氏菌进入后,首先面临的问题不是怎样迅速大量繁殖,而是能否找到足够的空间停留下来。
因此,定植抗性是一个成熟生态系统已经把大部分位置占满,使外来者难以建立稳定关系。
如果原有菌群因疾病、饮食剧烈变化或药物作用而明显减少,部分生态位置可能暂时空出,沙门氏菌获得立足机会的概率也可能上升。
2
争夺营养,让沙门氏菌难以持续扩增
空间只是第一步,细菌能否长期存在,还取决于能否获得足够营养。
肠道共生菌会持续消耗糖类、氨基酸、矿物质和其他生长所需物质。沙门氏菌进入后,需要与原有菌群争夺这些有限资源。
共生细菌通过多种策略抑制沙门氏菌在肠道环境中的定殖
编辑
doi.org/10.1080/19490976.2024.2424914
大肠杆菌和肠杆菌科成员等共生菌株产生抗菌肽和其他生物活性代谢物,进一步阻碍病原体的定植。此外,这些共生菌占据关键生态位,通过空间排斥和代谢优势阻止病原体的进入和定殖。
带鞭毛的大红色细菌代表沙门氏菌。
相关研究发现,不同共生菌可以通过竞争特定碳源、铁、锌和其他营养物质限制沙门氏菌。保护作用取决于整个菌群是否具有足够的资源竞争能力。
这也说明,单纯观察“菌种多不多”并不能完整判断肠道是否具备较强定植抗性。重要的是,菌群是否保留了占据生态位和消耗关键资源的功能。
共生大肠杆菌是目前研究较多的一类。小鼠来源的共生菌株大肠杆菌Mt1B1,可以与鼠伤寒沙门氏菌竞争半乳糖醇等碳源,减少沙门氏菌能够利用的生长资源。
人体来源的大肠杆菌Nissle 1917,也就是EcN,可以通过竞争铁、锌以及氧等资源,限制沙门氏菌在炎症肠道中的扩增。EcN还能够产生微菌素,直接抑制具有相应铁载体受体的沙门氏菌。因此,同一个共生菌株可以同时参与营养竞争和直接抑菌。
黏液相关共生菌Mucispirillum schaedleri能够利用硝酸盐,与沙门氏菌竞争呼吸所需的电子受体,并影响其侵袭相关基因表达。
3
代谢产物塑造不利于沙门氏菌的环境
共生菌在利用食物和黏液成分时,会产生短链脂肪酸等代谢物。
这些物质可以改变肠腔酸碱度、上皮代谢和局部氧环境,从而影响沙门氏菌的生长方式。
动物研究显示,部分拟杆菌产生的丙酸可以干扰鼠伤寒沙门氏菌的胞内pH稳态,限制其生长;给予丙酸或转移具有产丙酸能力的拟杆菌,也能够增强小鼠对沙门氏菌的定植抗性。
例如,产丁酸菌能够支持结肠上皮的正常能量代谢,使靠近肠腔一侧的氧被充分消耗,帮助维持低氧环境。这种环境更适合许多严格厌氧共生菌,却不利于沙门氏菌利用呼吸代谢迅速扩增。
关于炎症如何改变氧和其他代谢资源,将在后文单独讨论。
4
部分共生菌还会直接抑制沙门氏菌
一些肠道细菌能够产生细菌素或其他抑菌分子,直接限制邻近细菌。
例如,乳酸片球菌Pediococcus acidilactici产生的细菌素,在体外研究中能够抑制鼠伤寒沙门氏菌生物膜形成,同时限制浮游状态细菌的生长。
部分益生芽孢杆菌则可以产生subtilosin A、subtilin等细菌素,主要表现为抑制沙门氏菌生物膜形成,对浮游状态细菌的杀伤并不明显。
部分共生肠杆菌还可以与沙门氏菌竞争铁、氧和其他资源。此类作用往往具有明显的环境依赖性:同一种细菌在不同菌群背景、营养条件或炎症状态下,效果可能不同。
因此,不宜把某一个菌种简单标记为“保护菌”。
5
菌群还会帮助人体维持屏障
肠道菌群与上皮并不是彼此独立的。
正常菌群产生的代谢物,可以促进黏液分泌、上皮紧密连接和抗菌分子表达,使微生物竞争与人体屏障形成联合防御。
一旦菌群受到明显扰动,影响的不只是微生物数量,还可能包括黏液、上皮代谢和局部免疫功能。
动物研究常通过抗生素预处理削弱菌群,使沙门氏菌更容易定植并诱发炎症。这类模型说明,抗生素造成的菌群扰动可能降低定植抗性。
如果沙门氏菌无法获得稳定位置和足够资源,就可能随肠内容物排出;如果它成功突破这种生态防线,下一步才是靠近肠上皮、启动侵袭程序,并真正进入感染过程。下一章将讨论:沙门氏菌怎样从“已经到达肠道”进一步发展为“侵入上皮并引起疾病”。
沙门氏菌成功到达肠道并突破菌群的定植抗性后,并不意味着感染已经完成。要引起疾病,它还需要靠近肠上皮、完成黏附和侵入,并在宿主细胞内维持生存。
这一过程的关键,是沙门氏菌开始与人体组织发生直接相互作用。
1
先靠近并黏附肠上皮
肠内容物始终在移动。沙门氏菌如果不能及时靠近黏膜,就可能被继续向后输送并排出。
它可以借助鞭毛运动,向适合自身生存的区域移动,并利用表面黏附结构与黏液或上皮细胞形成接触。
肠腔中的沙门氏菌常驻形式
编辑
doi.org/10.1016/j.micres.2024.128013
黏附的意义在于,它让沙门氏菌不再只是悬浮在肠腔中的外来细菌,而是获得了进一步作用于上皮的机会。
这一步主要依赖菌毛和其他表面黏附结构。以I型菌毛为例,位于菌毛顶端的FimH能够识别宿主细胞或黏膜表面的特定分子,使细菌获得更稳定的接触。
部分沙门氏菌还会分泌由蛋白、多糖和胞外DNA构成的基质,形成生物膜。生物膜不仅让细菌更容易附着在肠道或环境表面,还可以延缓抗菌肽和部分抗生素对细菌的作用。因此,“能否黏住”本身就是决定短暂经过还是进一步感染的重要分界点。
不过,黏附本身还不等于侵入。决定沙门氏菌能否突破上皮的,是其后续启动的毒力程序。
编辑
2
利用SPI-1侵入上皮细胞
沙门氏菌的重要侵袭机制之一,是由沙门氏菌致病岛1编码的Ⅲ型分泌系统,通常简称为SPI-1或T3SS-1。
T3SS-1是沙门氏菌经典的触发式侵入装置。沙门氏菌通常先利用菌毛等结构接近并固定在上皮表面,随后通过T3SS-1把多种效应蛋白送入宿主细胞。
编辑
这些效应蛋白会操纵Rac1、Cdc42等细胞骨架调控通路,使上皮细胞的肌动蛋白重新排列,细胞膜形成明显褶皱,最终主动把细菌包入细胞内部。沙门氏菌因此不是单纯依靠机械力量钻进上皮,而是在改写宿主细胞自身的吞入程序。
沙门氏菌并非只有一条侵入路线
除了前面介绍的T3SS-1触发式侵入,沙门氏菌还可以通过其他途径进入肠上皮或黏膜组织。
其中一种是拉链式侵入。
在这种情况下,沙门氏菌表面的Rck、PagN、OmpV等蛋白与宿主细胞表面的受体结合,使细胞膜像逐步拉上拉链一样包裹细菌。与触发式侵入相比,这种方式引起的膜变化通常更加局部。
此外,沙门氏菌还可以利用肠道派尔集合淋巴结表面的M细胞跨越上皮,也可能被特定吞噬细胞摄取后带入黏膜组织。
因此,SPI-1是沙门氏菌重要的侵入系统,但不是唯一通道。不同侵入途径之间可能相互补充,这也意味着,某一条侵入路线受阻后,细菌未必会完全失去进入组织的能力。相关研究将沙门氏菌侵入概括为触发式、拉链式、M细胞途径、特定吞噬细胞途径及其他特殊机制。
3
进入细胞后,沙门氏菌还要避免被清除
细菌进入上皮细胞或被巨噬细胞吞噬后,通常会被包裹在细胞内囊泡中。
正常情况下,这类囊泡会逐渐与宿主的杀菌系统融合,使细菌受到酸化、活性氧、抗菌蛋白和营养限制。
沙门氏菌则能够改造这一细胞内环境,形成所谓的“沙门氏菌含菌液泡”。
此时,另一套由沙门氏菌致病岛2编码的Ⅲ型分泌系统,也就是SPI-2或T3SS-2,开始发挥重要作用。它可以向宿主细胞内输送效应蛋白,改变囊泡运输和细胞杀菌过程,从而帮助沙门氏菌继续存活和复制。
这也是为什么沙门氏菌一旦进入细胞,清除难度会明显增加。
编辑
沙门氏菌含菌液泡是会经历早期、中期和晚期的成熟过程。沙门氏菌通过T3SS-2输送多种效应蛋白,干扰Rab蛋白介导的囊泡运输、溶酶体融合和自噬识别,使含菌液泡避免被完整送入宿主的杀菌通路。
成熟的含菌液泡还可能向外伸出被称为“沙门氏菌诱导丝状结构”(Salmonella-induced filaments,SIF)的膜性管道。这些结构与宿主的膜运输和细胞骨架系统相连,有助于细菌维持含菌液泡并获得复制所需的物质。
不过,含菌液泡并不是绝对安全区。如果液泡受损,沙门氏菌仍可能被溶酶体或自噬系统清除。少部分细菌则可能逃出液泡,在上皮细胞胞质中快速增殖,形成所谓的“超复制”。
因此,进入宿主细胞并不意味着感染已经摆脱免疫控制,而是意味着双方的主要战场从肠腔转移到了细胞内部。
躲进细胞后,人体怎样继续追击?
无论是在上皮细胞内,还是被巨噬细胞、树突状细胞等吞噬细胞摄取后,沙门氏菌都要继续面对宿主的细胞内防御。
局部免疫细胞可以识别沙门氏菌的脂多糖、鞭毛蛋白以及被送入细胞内部的细菌成分,释放IL-1β、IL-18等炎症信号。随后,沙门氏菌特异性的CD4⁺ Th1细胞会产生IFN-γ,进一步激活巨噬细胞,增强其控制和杀灭细胞内细菌的能力。
编辑
因此,人体对付沙门氏菌并不只是依靠抗体在细胞外拦截,还需要T细胞向巨噬细胞发出指令,处理已经进入细胞内部的病原体。
注:现有证据主要来自小鼠感染模型,尤其适合解释侵袭性或系统性沙门氏菌感染。
在这场细胞内部的攻防发生之前和同时,肠道局部也会迅速启动炎症反应。腹泻、腹痛和发热,正是这种防御反应在临床上的表现。
4
腹泻和发热是怎样出现的?
沙门氏菌侵入上皮后,人体会迅速启动免疫反应。
上皮细胞和局部免疫细胞识别细菌及其结构后,会释放炎症信号,招募中性粒细胞,并增加肠腔中的液体和电解质分泌。
这些变化共同造成:
因此,症状不只是细菌直接损伤的结果,也来自人体清除感染时产生的炎症反应。
症状强弱与检测到的菌量并不一定完全一致。有人菌量不高,但炎症反应明显;也有人已经发生感染,却只有轻微不适。
5
为什么少数人会出现更严重的感染?
多数免疫功能正常的成年人,非伤寒沙门氏菌感染主要表现为局限于肠道的胃肠炎。
但如果沙门氏菌穿过上皮,并在吞噬细胞中持续生存,就可能进入肠系膜淋巴结,少数情况下进一步扩散至血液、肝脏、脾脏或其他组织。
沙门氏菌的系统性感染
编辑
doi.org/10.1016/j.micres.2024.128013
成功入侵肠道的沙门氏菌可以被巨噬细胞或树突状细胞吞噬。然后,它扩散到肠系膜淋巴结,进入血液,然后扩散到肝脏和脾脏,最终导致沙门氏菌在全身传播。
是否发生这种肠外扩散,与多个因素有关:
因此,同样是沙门氏菌感染,健康成年人可能只出现短期腹泻,而婴幼儿、老年人或免疫功能低下者则更需要警惕严重感染。
沙门氏菌侵入肠上皮后,人体会迅速启动炎症反应。
这套反应的首要目的,是限制细菌扩增、清除受感染细胞,并阻止病原体继续向组织深处扩散。中性粒细胞、巨噬细胞、活性氧和活性氮等防御机制,都会参与这一过程。
但炎症并不是只作用于沙门氏菌的“精准武器”。它同时会改变肠道中的氧、营养、电子受体和菌群结构。沙门氏菌恰好具备利用这些变化的能力,因此可能在炎症环境中获得新的生长优势。
也就是说,炎症既是人体清除感染的重要手段,也可能在某些条件下,为沙门氏菌创造更适合扩增的环境。
炎症会改变肠道中的氧环境
前面提到,正常菌群及其代谢活动有助于维持结肠相对低氧的环境,并通过营养竞争限制沙门氏菌扩增。
炎症发生后,这种平衡可能被打破。
部分产丁酸菌可能减少,上皮对丁酸的利用下降,进入肠腔的氧随之增加。原本以严格厌氧菌为主的低氧环境,开始更有利于兼性厌氧肠杆菌科细菌。
动物研究显示,丁酸产生梭菌减少后,肠腔氧水平上升,可推动沙门氏菌在肠道内扩增。
这并不是说氧本身造成感染,而是炎症改变了不同细菌之间的竞争条件。
编辑
炎症还会产生新的“呼吸资源”
细菌获得能量时,需要电子供体和电子受体。正常低氧肠道中,可供沙门氏菌进行呼吸的电子受体较少,它更多依赖效率较低的发酵。炎症产生的活性氧和活性氮,则可以推动硝酸盐、四硫代硫酸盐等氧化物形成。
这些物质可以被沙门氏菌利用,进行硝酸盐呼吸或四硫代硫酸盐呼吸。
研究指出,炎症环境可提供氧、氧化氮化合物和氧化硫化合物等电子受体,使沙门氏菌获得比部分共生菌更高的能量效率。
因此,人体制造这些氧化物原本是为了攻击病原体,却也无意中创造了沙门氏菌可以利用的代谢条件。
这些含硫资源,也可能经过菌群共同加工
四硫代硫酸盐和硫代硫酸盐等含硫电子受体,并不完全是宿主单独产生的。肠道菌群也可能参与其前体物质的生成。
一项未进行抗生素预处理的小鼠多组学研究发现,沙门氏菌感染后,肠道中的硫酸化胆汁酸、硫酸化黄酮以及氧化蛋氨酸等有机硫化合物发生了明显变化。肠道细菌可以利用硫酸酯酶或含硫氨基酸代谢通路,从这些有机物中释放硫酸盐或硫化氢。
在这一小鼠模型中,粪肠球菌、鸡肠球菌和沙门氏菌贡献了大部分检测到的硫酸酯酶转录;嗜黏蛋白阿克曼菌、Luxibacter、Anaerotruncus及其他部分梭菌,也表达了参与蛋氨酸和半胱氨酸转化的相关基因。
这些菌群产生的硫化氢随后可在炎症产生的活性氧作用下,被氧化成硫代硫酸盐和四硫代硫酸盐。沙门氏菌则具备利用这些物质进行呼吸的能力,从而获得相对于许多发酵型共生菌的能量优势。
因此,炎症环境中的含硫“呼吸资源”,可能是宿主反应、菌群代谢和沙门氏菌利用能力共同作用的结果。
炎症还会改变碳源由谁产生、由谁利用
炎症不仅改变电子受体,也会重新组织肠道中碳源的生产和利用关系。同一种代谢物,可能由一种细菌产生,又被另一种细菌利用。
编辑
乳酸就是一个代表性例子。
在一项小鼠多组学研究中,沙门氏菌感染组粪便中的乳酸平均丰度约为未感染组的3.9倍。
宏转录组结果显示,约翰逊乳杆菌、动物乳杆菌、粪肠球菌、鸡肠球菌等乳杆菌,可能是感染环境中乳酸的重要来源。沙门氏菌则表达了利用D-乳酸和L-乳酸的相关基因,提示它可能把宿主和其他菌群产生的乳酸作为碳源。
但乳酸并不只会流向沙门氏菌。Luxibacter、Acetatifactor、Anaerotruncus等部分梭菌类群,也可能利用乳酸并将其转化为丁酸或乙酸,从而与沙门氏菌形成底物竞争。
因此,感染肠道中的乳酸代谢可能同时存在交叉喂养和资源竞争。某一种菌或代谢物究竟有利还是不利,取决于它处于怎样的菌群网络和炎症环境中。
除乳酸外,研究还检测到沙门氏菌表达利用琥珀酸、1,2-丙二醇、乙醇胺、岩藻糖和阿拉伯糖等碳源的相关基因。这说明沙门氏菌能够根据炎症环境中的资源变化,灵活调整自身的代谢策略。
注:这些机制大量来自小鼠模型、无菌或简化菌群模型以及代谢组研究。
炎症和沙门氏菌形成正反馈
在某些情况下,可能出现以下过程:
沙门氏菌侵入上皮→ 人体启动炎症→ 氧、电子受体和碳源发生变化→ 部分共生菌竞争力下降→ 沙门氏菌获得扩增优势→ 更多细菌继续刺激炎症
编辑
这是一种可能的正反馈。这构成了一种可能的正反馈:炎症原本是为了限制感染,却可能改变肠道生态,使沙门氏菌获得新的代谢优势。
但它不会无限持续。肠道运动、免疫清除、上皮修复和菌群恢复都会限制沙门氏菌。最终是被清除、短期携带还是继续感染,取决于病原体利用环境的能力与宿主防御之间的平衡。
上一章讨论了炎症如何改变肠道中的氧、电子受体和碳源,使沙门氏菌获得新的生长条件。
但肠道中的化学物质并不只是营养。一些物质还可以被沙门氏菌识别为环境信号,告诉它:当前更适合侵入上皮,还是降低侵袭程序、转而在肠腔中增殖和维持定植。
不同肠段,会向沙门氏菌发出不同信号
沙门氏菌进入肠道后,并不会始终维持相同的侵袭状态。
在十二指肠,较高浓度的胆汁会抑制部分侵入上皮所需的功能,避免沙门氏菌过早启动强烈的侵袭和炎症反应。
到达回肠后,局部浓度较高的甲酸可以促进侵袭相关基因表达,使回肠成为沙门氏菌较重要的侵入部位。
编辑
继续进入结肠后,化学环境再次发生变化。这里存在较多短链和长链脂肪酸,其中一些能够抑制沙门氏菌的侵袭基因,使其从积极侵入上皮的状态,逐渐转向肠腔内增殖和结肠定植。
因此,沙门氏菌的毒力程序并不是简单地“打开”或“关闭”,而是受到肠道位置和局部化学环境的动态调节。
侵袭能力越强,不一定越有利于长期生存
沙门氏菌的SPI-1侵袭系统由大量结构蛋白和效应蛋白组成。合成和维持这套装置需要消耗相当多的能量与物质,代谢成本较高。
一项研究使用了一种不能正常响应脂肪酸抑制信号的沙门氏菌突变株。该突变株会持续表达较高水平的SPI-1:
进一步删除SPI-1后,这种长期生存劣势随之消失,说明问题主要来自持续制造SPI-1装置本身的代谢成本,而不只是细菌是否真正进入了上皮细胞。
因此,“侵袭基因表达下降”不能简单理解为沙门氏菌已经失去危害。有时,这意味着它正在从积极侵袭转向更有利于增殖、定植和传播的状态。
编辑
c2-HDA研究提供了一个具体例子
这项研究重点分析了肠道相关细菌嗜麦芽寡养单胞菌,在氧化应激条件下,产生的一种脂肪酸信号——顺式-2-十六碳烯酸,简称c2-HDA。
c2-HDA属于扩散性信号因子家族。沙门氏菌感知这种分子后,c2-HDA可以作用于SPI-1的核心调控蛋白HilD,促进HilD降解,并干扰其与DNA结合,从而降低hilA、sopB等侵袭相关基因的表达。
研究发现,在氧化应激和亚硝化应激条件下,嗜麦芽寡养单胞菌会通过RpfF相关通路增加c2-HDA的产生。沙门氏菌诱发的炎症可以激活巨噬细胞,产生活性氧和活性氮;这些炎症信号又可能改变嗜麦芽寡养单胞菌的代谢输出,使其释放更多c2-HDA。
沙门氏菌随后感知c2-HDA,降低SPI-1表达,将一部分原本用于制造侵袭装置的资源转向细菌增殖。
研究者还专门检验了c2-HDA是不是仅仅被沙门氏菌当作脂肪酸碳源。
结果显示,即使沙门氏菌不能正常通过β-氧化利用脂肪酸,c2-HDA仍然可以促进其生长;而不能响应c2-HDA调控信号的突变株则没有获得这种优势。这说明c2-HDA在这里主要发挥的是调控信号作用,而不是简单地为沙门氏菌提供食物。
这一结果可以概括为:
沙门氏菌诱发炎症→ 局部氧化应激增强→ 共生菌改变代谢物产生→ 沙门氏菌感知代谢信号→ 调整侵袭和增殖策略
这是一种“宿主-菌群-病原体”三方信号链。沙门氏菌不仅会利用炎症产生的氧和电子受体,还能利用炎症对其他菌群成员造成的代谢变化,调整自己的感染策略。
降低炎症,不一定意味着沙门氏菌数量减少
这个研究中还有一个看似矛盾的结果。
在产生c2-HDA的嗜麦芽寡养单胞菌存在时,沙门氏菌的侵袭基因表达和结肠炎症指标下降,但沙门氏菌的结肠定植能力反而增强。能够感知c2-HDA的沙门氏菌,比不能感知这一信号的突变株获得了更明显的定植优势。
这说明:
炎症减轻、侵袭基因降低和病原体被完全清除,并不是同一件事。
病原体有时可以通过降低高成本、高炎症的侵袭程序,转向症状相对缓和但更适合持续定植的状态。
注:这只是在特定实验模型中观察到的现象,不能据此推断无症状携带者都存在同样的机制。
嗜麦芽寡养单胞菌曾在人体结肠隐窝或黏膜相关样本中被发现,但在人体粪便菌群研究中并不普遍,不能将其视为人人都具有的核心肠道菌。
这项研究主要基于体外实验和小鼠模型。这项研究说明,肠道菌群不仅通过竞争资源影响病原体,还可能通过化学信号改变病原体的行为。
沙门氏菌也不是一种始终保持高侵袭状态的细菌。它会根据肠道位置、炎症水平和菌群代谢信号,在侵袭、增殖和持续定植之间调整策略。
沙门氏菌能够突破肠上皮、进入宿主细胞,并根据肠道环境调整侵袭和定植策略,但这仍不意味着感染一定会持续发展。
细菌最终是被清除、短期存在,还是继续扩增并向肠道以外传播,很大程度上取决于人体能否及时控制已经进入细胞和组织的沙门氏菌。
控制细胞内细菌,是阻止扩散的关键
沙门氏菌进入巨噬细胞等吞噬细胞后,人体与病原体的主要较量会转移到细胞内部。
对抗沙门氏菌感染的适应性免疫反应
编辑
doi.org/10.1016/j.imlet.2024.106930
吞噬细胞会通过酸化、活性氧、活性氮、营养限制等方式杀伤细菌。与此同时,宿主细胞还可以识别沙门氏菌进入细胞内部的成分,释放IL-1β、IL-18等炎症信号。
其中,IL-18可以增强CD4⁺ Th1细胞产生IFN-γ的能力。IFN-γ进一步激活巨噬细胞,提高其控制细胞内沙门氏菌的能力。
因此,人体对付沙门氏菌,并不只是依靠抗体在细胞外识别细菌,还需要T细胞和吞噬细胞协同处理已经进入细胞内部的病原体。
如果这一控制及时建立,感染通常会逐步受到限制;如果吞噬细胞杀菌能力、T细胞反应或相关免疫通路受到明显影响,沙门氏菌持续存在和肠外扩散的风险可能增加。
免疫反应既要有效,也不能过度
炎症的目的,是限制细菌扩增并清除感染,但免疫反应并不是越强越好。
因此,决定感染结局的并不是某一种炎症因子越高越好,而是人体能否形成一种有效、协调而不过度的免疫反应。
谷禾肠道菌群检测报告中同时涉及IL-1β、IL-18、TNF-α、IFN-γ等炎症相关指标,它们可以作为免疫激活或黏膜炎症的线索,但通常不具有沙门氏菌特异性。
注:单独一个炎症指标,不能证明沙门氏菌正在引起活动性感染;指标变化是否同时伴有腹泻、发热、腹痛或其他临床表现。
为什么健康成年人往往能够自行控制感染?
对于多数免疫功能正常的成年人,非伤寒沙门氏菌感染通常表现为自限性胃肠炎,也就是说,人体往往可以依靠自身免疫系统逐步控制感染。
婴幼儿、老年人、免疫功能低下者,以及存在严重基础疾病的人,可能因为屏障功能、吞噬细胞杀菌能力或适应性免疫不足,更容易出现严重感染或肠外扩散。
因此,同样一次暴露,最终结局可能不同:
免疫反应并不是越强越好
免疫反应的目标不是制造最大程度的炎症,而是在清除病原体的同时尽量减少组织损伤。
反应过弱,沙门氏菌可能继续扩增和扩散;反应过强,则可能造成明显腹泻、黏膜损伤和更剧烈的炎症。
因此,有利的状态是有效而不过度的免疫控制。
看现在,有没有症状?
-没有任何明显不适
如果目前没有腹泻、发热、明显腹痛、恶心、呕吐等症状,日常状态也正常,那么一次菌群检测中发现沙门氏菌,并不能直接说明正在发生活动性感染。
它可能对应近期的一次暴露、短暂经过,也可能是低水平存在。这种情况下,没有必要因为看到“沙门氏菌”几个字就立即把自己当成感染患者,更不建议自行使用抗生素。
为什么不能仅凭检测结果自行选择抗生素?
沙门氏菌可能携带多种耐药基因。这些基因可以通过产生药物灭活酶、保护抗生素作用靶点或增强药物外排等方式,降低抗生素对细菌的抑制和杀伤作用。
耐药基因,会怎样影响抗生素的作用?
例如,blaTEM和blaCTX-M类基因主要与β-内酰胺类药物耐药有关(这些基因导致沙门氏菌对氨苄西林、四环素、氯霉素和复方新诺明等传统常用药物普遍耐药)。
编辑
doi: 10.1080/19490976.2023.2229937
耐药基因还可能位于质粒等可移动遗传元件上,在细菌之间传播,使一个菌株同时获得对多类抗菌药物的耐受能力。
一株沙门氏菌可能同时携带多种耐药基因,从而形成多重耐药。不同血清型和不同地区流行菌株携带的耐药基因组合并不相同,因此耐药情况需要结合具体菌株进行判断。
注:抗生素清除缓慢并不一定完全都是耐药基因造成的。即使实验室药敏结果仍显示敏感,沙门氏菌在感染组织中也可能因营养匮乏、生长速度降低而对抗生素杀伤表现出暂时耐受。
因此,耐药基因检测只能提示细菌可能具有什么耐药能力,培养药敏反映细菌在实验室条件下对药物是否敏感,而抗生素在人体内能否顺利清除细菌,还会受到感染部位、细菌生长状态和人体免疫反应等因素影响。
可以先回顾近期有没有可能的暴露,例如吃过未充分加热的禽肉、蛋类或肉制品,是否存在生熟食物交叉污染,是否接触过可能携带沙门氏菌的动物或其排泄物。
继续观察。
-检出沙门氏菌,同时正在腹泻、发热或腹痛
这种情况下,这个结果就更值得重视。
尤其是近期突然出现明显腹泻、腹痛、发热、恶心或呕吐,同时又存在可疑饮食或动物接触史,沙门氏菌检出与当前胃肠道症状之间的关联需要进一步评估。
多数免疫功能正常成年人发生非伤寒沙门氏菌胃肠炎后可以逐渐自行恢复,但症状严重程度存在明显个体差异。
但如果出现持续高热、明显脱水、血便、严重腹痛,或者症状持续加重,应及时去医院。
婴幼儿、老年人、免疫功能低下者以及存在严重基础疾病的人,也需要更加谨慎。这种情况需要及时就医,谷禾肠道菌群检测报告可以辅助临床医生判别,或者结合专门的病原检测、培养以及其他临床信息进一步确认。
采样前,是不是刚有过一轮胃肠道症状?
有这样一种情况:
前几天刚刚腹泻、发热或肚子不舒服,等到采样或拿到报告时,症状已经基本消失了。
这时候仍然检出沙门氏菌,并不矛盾。
症状缓解,主要说明肠道炎症和宿主反应正在恢复,并不意味着沙门氏菌一定在症状消失的那一天同步完全清除。
注:临床症状恢复和微生物学上的完全清除,不一定发生在同一个时间点。
如果近期确实经历过一次急性胃肠道症状,再结合可疑饮食史,报告中的沙门氏菌就可能与前一段时间的感染或暴露有关。
此时更重要的是观察症状是否已经稳定恢复。
近期有没有比较明确的暴露机会?
回想检测前一段时间是否有:
果蔬、沙拉等,也可能受到沙门氏菌污染
生产链长、污染源难追溯
2020年,北美曾发生一起与红洋葱相关的纽波特沙门氏菌(Salmonella Newport)暴发。调查将涉事产品追溯至美国加利福尼亚州的一家农场,这也是美国近30年来规模较大的沙门氏菌暴发之一。但即使经过流行病学调查,研究人员仍未能最终确定细菌最初从哪里进入生产链。
这类情况并不罕见。果蔬从农田到餐桌,要经历灌溉、施肥、采收、清洗、分拣、包装、冷藏和运输等多个环节。受到动物粪便或污水影响的灌溉水、未经充分处理的有机肥、受污染的清洗用水、加工设备和包装环境,都可能将沙门氏菌带到食物表面。由于洋葱等产品通常不会在食用前接受充分加热,一旦污染发生,后续就缺少彻底杀灭细菌的步骤。
同一血清型可能具有多种宿主和传播来源
2019年,美国还报告了与新鲜木瓜有关的 乌干达沙门氏菌(Salmonella Uganda)暴发,涉事产品被追溯至墨西哥的一家农场。调查认为,污染可能发生在采收前、采收过程中或采收后的处理环节,但由于生产和流通记录不完整,最终仍无法确定具体污染节点。值得注意的是,乌干达沙门氏菌此前还曾与猪肉和宠物鬃狮蜥相关,说明部分血清型可以跨越不同动物、食品和环境来源传播。
这两个案例说明,果蔬相关的沙门氏菌风险并不是蔬菜水果自己产生了细菌,而是细菌借助水、土壤、动物、设备和人员操作进入了食品生产链。与肉类不同,很多果蔬、沙拉等即食食品没有最终加热环节,因此前端的一次污染,可能一直保留到入口时。
对普通人而言,这并不意味着要减少果蔬摄入,而是要认识到“新鲜”和“即食”并不等于没有微生物风险。购买预切水果、沙拉和即食凉菜后,应注意冷藏条件和保质时间;处理完整果蔬时,应先清洁双手和操作台面,并避免让清洗后的食物再次接触生肉汁液、未经清洁的刀具或砧板。
没有症状,但还是有点担心,怎么办?
对于目前完全没有症状、也不属于高风险人群的人,一次菌群检测发现非伤寒沙门氏菌,通常不需要因为这一项结果立即采取激进处理。
更实际的做法是:
先观察身体状态,同时减少新的暴露机会。
如果仍然比较在意这个结果,可以在间隔一段时间后,在身体状态和采样条件相对稳定的情况下再次检测,看看这一信号是否仍然存在。
如果再次检出,则说明这个信号并非只出现在第一次样本中,值得进一步结合症状、暴露史以及具体情况分析。
总的来说,谷禾肠道菌群检测更适合作为理解肠道微生态状态的一个窗口,而不能脱离症状和临床背景,把某一个菌的检出直接当成疾病诊断。本身属于高风险人群或者已发生感染症状人群,应及时进入临床诊疗路径。
如果谷禾肠道菌群检测中检出沙门氏菌,真正能够落实到个人层面的干预主要有两部分:
近年来研究者也在探索能否通过益生菌、益生元或合生元、菌群代谢物以及植物来源活性物质,增强肠道原有的定植抗性,或者直接降低沙门氏菌的定植和致病能力。
益生菌
植物乳杆菌 Lactobacillus plantarum Lp01
Liu 等在小鼠感染模型中使用来源于猪肠道的 Lp01,益生菌浓度为 5×10⁹ CFU/mL,随后以 5×10⁸ CFU/mL 的S.Typhimurium ATCC14028进行感染。结果显示,Lp01 可改善小鼠存活,并降低肝脏和脾脏中的鼠伤寒沙门氏菌水平。
干酪乳杆菌 Lactobacillus casei ATTC334
El-Sharkawy 等开展的是肉鸡模型。益生菌浓度为 2×10⁹ CFU/mL,挑战用 S. Typhimurium 为 1×10⁸ CFU/mL。研究观察到,使用该菌株后,从盲肠扁桃体回收到的 S. Typhimurium 减少。
婴儿双歧杆菌Bifidobacterium infantisBL2416
肉鸡实验,益生菌浓度 2×10⁹ CFU/mL,S. Typhimurium 挑战浓度 1×10⁸ CFU/mL。研究观察到 S. Typhimurium 数量减少,同时 IFN-γ 和 TNF-α 水平增加。
枯草芽孢杆菌 Bacillus subtilis CSL2
在蛋鸡模型中使用 1×10⁷ CFU/g 的 B. subtilis CSL2,并以 1×10⁸ CFU/mL 的 S. Gallinarum KVCC-BA0700722进行挑战。研究报告粪便菌群状态趋于正常,同时乳杆菌增加。
注:这里研究的是禽类沙门氏菌模型,并不能直接套用于人体非伤寒沙门氏菌感染。
枯草芽孢杆菌 B. subtilis HU58 + 地衣芽孢杆菌 B. licheniformis SC307
S. Enteritidis 挑战浓度为 4×10⁹ CFU/mL。研究结果显示,这组芽孢杆菌干预可降低肉鸡胃肠道中的沙门氏菌负荷。
大肠杆菌 Nissle 1917(EcN)
EcN 可以与沙门氏菌竞争铁等矿物资源,从而降低 S. Typhimurium 的肠道定植;EcN 产生的微菌素还可在炎症环境中限制 S. Typhimurium,而对整体菌群的影响相对有限。
益生芽孢杆菌(probiotic Bacilli)
一项体外生物膜研究:益生芽孢杆菌产生的 subtilosin A、subtilin 等细菌素可以抑制沙门氏菌生物膜形成,而并未明显杀伤浮游状态的细菌。
益生元、合生元
Asahara 等在 2001 年的小鼠研究中,将双歧杆菌与反式半乳糖基化低聚糖(transgalactosylated oligosaccharides)联合使用,结果显示小鼠对 S. Typhimurium 感染的抵抗力提高。
膳食、营养干预
维生素B12
一项小鼠研究发现,维生素B12缺乏会减少短链脂肪酸产生菌,并有利于 S. Typhimurium 扩增;补充维生素B12后,这些变化可以得到恢复。
维生素A
2024 年的一项小鼠研究显示,维生素A缺乏会损害中性粒细胞对沙门氏菌的控制,使动物更容易发生播散性非伤寒沙门氏菌感染。
膳食纤维
肠道细菌发酵膳食纤维可产生乙酸、丙酸和丁酸等短链脂肪酸。体外实验显示,从粪便材料中分离出的乙酸和丁酸能够抑制 S. Enteritidis 生长,尤其是在厌氧和接近小鼠结肠pH的条件下。
恢复正常、多样化饮食和菌群代谢功能可能有益,但不能把某一种纤维或糖类简单视为“抗沙门氏菌益生元”。
菌群代谢物
丙酸
研究显示,丙酸能够抑制S. Typhimurium;综述同时提到,直接给予丙酸或能够产生丙酸的拟杆菌属,都可以增强定植抗性。
琥珀酸
研究表明,给予琥珀酸可促进有益梭菌定植、降低肠道中的 S. Typhimurium 负荷,并降低肠道氧浓度。不过研究同时提醒,沙门氏菌在其他环境下也可能利用宿主来源琥珀酸增强自身毒力,因此这一作用具有明显环境依赖性。
γ-氨基丁酸(GABA)
在小鼠模型中,GABA以及伴随增加的 Alistipes、Lactobacillus 与沙门氏菌感染受抑制相关。
这些结果说明后生元或微生物代谢物也是值得研究的方向,但同样还不能直接转化成普通人的补充剂处方。
植物化学物质
酚类、多酚与单宁
酚类相关物质包括黄酮、儿茶素、白藜芦醇,以及缩合单宁、没食子单宁、黄烷醇没食子酸酯、鞣酸和没食子酸。
研究表明,这类物质可通过影响细胞壁或细胞膜、螯合金属离子、降低部分细菌蛋白酶活性,以及干扰群体感应等途径,抑制沙门氏菌生长或定植;部分单宁还被讨论为可能影响黏液、紧密连接和局部免疫反应。
精油成分与萜类
研究列出具体成分包括香芹酚(carvacrol)、百里香酚(thymol)、丁香酚(eugenol)、肉桂醛和反式肉桂醛(cinnamaldehyde/trans-cinnamaldehyde)、香叶醇(geraniol),以及茶树油中的萜品-4-醇(terpinen-4-ol)、1,8-桉叶素(1,8-cineole)、α-松油醇(α-terpineol)、萜烯和倍半萜。
例如,丁香酚是丁香等植物中的一种活性成分。
Zhao 等的研究显示,丁香酚能够显著下调 S. Typhimurium多种与T3SS和毒力相关的基因,包括 SipA、SipC、SpiC、MisL、HilA 和 HilD。
生物碱及其他活性成分
这些物质包括小檗碱(berberine)、5′-甲氧基氢化可豆素(5′-methoxyhydnocarpin)、胡椒碱(piperine)、β-间苯二酚酸(β-resorcylic acid) 和辣椒油树脂(capsicum oleoresin)等。
小檗碱与5′-甲氧基氢化可豆素被描述为可共同促进小檗碱在细菌内积累并抑制多药耐药外排泵;胡椒碱与部分氨基糖苷类抗生素的组合,表现出协同或杀菌活性。
白术提取物
Gao 等研究的是白术氯仿提取物。这是一项以沙门氏菌生物膜、黏附和宿主细胞侵袭为终点的体外/细胞实验。
研究发现,该提取物能够抑制 S. Typhimurium 生物膜形成,并下调与鞭毛、菌毛和生物膜相关的 filA、filC、fimA、fimH、csgA 和 csgB 等基因,随后观察到沙门氏菌黏附和侵袭宿主细胞的能力下降。
植物化学物质及其对沙门氏菌的最低抑菌浓度
编辑
编辑
doi: 10.3389/fvets.2023.1188752
植物化学物质 + 抗生素
植物化学物质与抗生素联用,可能通过抑制外排泵、破坏细胞膜、干扰生物膜形成,以及抑制药物灭活或靶位修饰机制,提高耐药沙门氏菌对抗生素的敏感性。
研究列举了丁香酚或肉桂醛与抗生素联用破坏 S. Typhimurium 生物膜的结果;百里香酚、胡椒碱与阿米卡星、卡那霉素或链霉素联用也表现出协同抑菌作用。
植物化学物质与抗生素协同活性及其最小抑菌浓度
编辑
doi: 10.3389/fvets.2023.1188752
注:现有证据主要来自体外研究,并不是自行把植物提取物或精油与抗生素联合使用的依据。临床应用仍需进一步验证。
沙门氏菌能否在肠道定植并诱发疾病,是菌株特性、暴露剂量、肠道屏障完整性、肠道微生态基线以及宿主免疫状态共同作用的结果。
伴随微生态机制研究持续深入,益生菌、菌群代谢物与植物源活性物质,有望为沙门氏菌的风险管控提供新的干预思路。
肠道菌群检测可解析肠道群落组成与功能特征,辅助识别相关潜在风险、评估肠道生态状况,对有可疑暴露史或反复检出相关致病菌的人群,可为个体化健康评估提供参考信息。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
主要参考文献
Chowdhury R, Bosire EM, Wolverton LR, Pavinski Bitar PD, Bell KE, Keresztes I, Chien RC, Altier C. Salmonella exploits a quorum-sensing family signal of the gut commensal Stenotrophomonas maltophilia to facilitate its colonization. Gut Microbes. 2026 Dec 31;18(1):2699455.
Almuzaini AM. Phytochemicals: potential alternative strategy to fight Salmonella enterica serovar Typhimurium. Front Vet Sci. 2023 May 16;10:1188752.
Wu Y, Liu Y, Ma J, Zhu S, Zhao X, Mou H, Ke X, Wu Z, Wang Y, Lin S, Qi W. A Microfluidic Biosensor for Quantitative Detection of Salmonella in Traditional Chinese Medicine. Biosensors (Basel). 2024 Dec 27;15(1):10.
Najim TM, Raad AS, Hussein AA, Hasan MS. Epidemiology and antibiotic resistance of Salmonella spp. in pet dogs: Implications for public health. Open Vet J. 2025 May;15(5):1998-2003.
Leleiwi I, Kokkinias K, Kim Y, Baniasad M, Shaffer M, Sabag-Daigle A, Daly RA, Flynn RM, Wysocki VH, Ahmer BMM, Borton MA, Wrighton KC. Gut microbiota carbon and sulfur metabolisms support Salmonella infections. ISME J. 2024 Jan 8;18(1):wrae187.
Song Y, Ni T, Zhao Y, Sang Z, Wang Q, Xia X, Liu C, Zhang W, Li S, Deng B, Wu P, Tan J, Li Z, Li W. Reactive oxygen species and reactive nitrogen species are double-edged swords in Salmonella infection. Arch Microbiol. 2025 Aug 6;207(9):215.
Soni, S., Gambhir, L., Sharma, G. et al. Unraveling the treasure trove of phytochemicals in mitigating the Salmonella enterica infection. Folia Microbiol 70, 1–17 (2025).
He X, Guo J, Bai Y, Sun H, Yang J. Salmonella-based therapeutic strategies: improving tumor microenvironment and bringing new hope for cancer immunotherapy. Med Oncol. 2024 Dec 12;42(1):27.
Ayuti SR, Khairullah AR, Al-Arif MA, Lamid M, Warsito SH, Moses IB, Hermawan IP, Silaen OSM, Lokapirnasari WP, Aryaloka S, Ferasyi TR, Hasib A, Delima M. Tackling salmonellosis: A comprehensive exploration of risks factors, impacts, and solutions. Open Vet J. 2024 Jun;14(6):1313-1329.
谷禾健康
说到维生素D,人们通常先想到补钙、长个子和预防骨质疏松。实际上,它在人体中的作用并不局限于骨骼。在肠道、免疫细胞和神经系统等多种组织中,都能发现维生素D受体。维生素D转化为活性形式后,可能参与肠道屏障维护、免疫反应调节、神经发育以及身体稳态的维持。
不过,这些作用有一个前提:维生素D必须先被身体顺利吸收、运输和转化。
以口服补充剂为例,它需要先经过肠道吸收,再进入血液循环,并在肝脏、肾脏及部分局部组织中完成后续转化。这个过程中的任何一个环节出现问题,都可能影响最终的检测结果和利用效率。
例如,小肠黏膜状态、脂肪消化能力、胆汁酸分泌、慢性炎症以及肠道菌群,都可能影响维生素D的吸收。消化吸收不良、饮食长期受限,或身体处于某些特殊生理状态时,维生素D水平也可能更容易出现波动。
与此同时,维生素D与肠道之间并不是单向关系。肠道状态会影响维生素D的吸收和利用;维生素D也可能通过维生素D受体,参与维持肠道上皮连接、调节黏膜免疫,并影响局部微生物的生存环境。
当维生素D水平长期偏低时,答案未必只是再多补一点。需要判断的是:问题出在摄入不足、肠道吸收、体内转化,还是持续存在的炎症和代谢消耗。
佝偻病、鱼肝油、阳光:维生素D是怎样被发现的?
20世纪初,工业化城市里出现了一种令人困惑的现象。
不少儿童双腿弯曲、骨骼变软,生长也受到影响。医生知道这是一种佝偻病,却说不清它为什么在拥挤、烟雾笼罩的城市中格外常见。
医生逐渐发现两件看起来似乎没有联系的事:
1919年前后,德国医生库尔特·胡尔兹钦斯基(Kurt Huldschinsky)通过紫外线照射改善了佝偻病儿童的骨骼状况。
几年后,Elmer McCollum等人在鱼肝油中确认了一种不同于维生素A的“抗佝偻病因子”。
这种物质被命名为维生素D(即第四种维生素)。
从阳光和食物中获得的维生素D,其实还不能直接“上岗”
我们习惯把维生素D当作一个单独的名称,但它在人体中并不是始终保持同一种形态。
常见的初始形式主要有两种:
维生素D₂ 和 维生素D₃
维生素D3的生物效价通常被认为高于维生素D2。研究表明,在同等剂量下,维生素D3提升血清25-羟基维生素D(25(OH)D)水平的效果优于维生素D2,且维持时间更长。因此,临床上多数维生素D补充剂采用D3形式。
但无论是D₂还是D₃,刚进入人体时都只是原始形式,还要继续转化。
它们首先在肝脏中转化,变成25-羟维生素D[25(OH)D]。
这是血液中较主要、相对稳定的循环形式,也是目前评价维生素D状态最常使用的指标。
随后再主要由肾脏以及部分局部组织进一步活化,进一步转化为具有更强生物活性的1,25-二羟维生素D[1,25(OH)₂D]。
它与维生素D受体VDR结合后,才能参与调节相应的细胞活动。
这也是为什么,“吃进去了多少”与“身体最终利用了多少”,并不总是同一件事。
Q:为什么通常测的是25(OH)D,而不是活性更强的1,25(OH)₂D?
A:25(OH)D在血液中的含量更高、相对稳定,更适合反映总体维生素D状态。
而1,25(OH)₂D受到甲状旁腺激素、钙磷水平和肾功能等因素的严格调节,即便维生素D储备不足,其数值也可能暂时维持,因此通常不用于常规判断维生素D是否缺乏。
晒太阳就可以补充,为什么维生素D不足仍然常见?
维生素D不足,到底有多常见?
我们先来看一组数据。
2023年发表的一项全球汇总分析,纳入了2000—2022年间的308项人群研究,覆盖81个国家,共计7,947,359名参与者。研究发现:
换句话说,即使采用相对严格的低值界限,维生素D明显偏低也不是少数人的情况;若采用50nmol/L这一更宽的界限,涉及的人群范围会进一步扩大。
不同指南对“缺乏”“不足”和“充足”的界定存在差异。
那么问题来了,
既然人体能够通过皮肤合成维生素D,
阳光也从未消失…
为什么维生素D低水平仍然广泛存在?
现代人的生活轨迹:
白天在办公室,通勤在车内,晚上运动在健身房,基本娱乐活动都可以发生在室内。人并不是完全没有接触阳光,而是真正用于皮肤合成维生素D的机会,可能比想象中少。
该研究中提到,皮肤最终能够合成多少维生素D,会受到季节、纬度、户外时间、肤色、年龄、衣着和空气环境等多重因素影响。
食物中的天然维生素D来源又相对有限;
对于存在脂肪吸收障碍、胃肠道疾病或肝肾功能异常的人,吸收和转化过程还可能受到进一步影响。
编辑
Cui et al., Frontiers in Nutrition (2023)
从骨骼出发,但没有停在骨骼
维生素D对骨骼和钙磷代谢的作用,仍然是目前最明确、最基础的科学认识。
改变人们认识的,是维生素D受体在全身多种组织中的发现。
VDR不仅存在于与骨代谢相关的组织,也分布在小肠和大肠上皮细胞,以及单核细胞、巨噬细胞、树突状细胞、T细胞和B细胞等多类免疫细胞中。
编辑
维生素D与VDR结合后,可以参与调节肠道屏障、黏膜防御和免疫反应。
因此,维生素D是维持身体稳态的众多参与者之一。疾病可能影响维生素D状态,维生素D不足也可能让某些调节过程更难保持稳定;两者之间往往是复杂的双向关系。
也正因为如此,我们看待维生素D时,不能只停留在“有没有吃进去”。还要继续看:
它能否被顺利吸收和转化?
细胞能否接收到它传递的信号?
肠道屏障、免疫系统和菌群,又在其中扮演了什么角色?
下一章,我们就从维生素D进入肠道之后开始。
维生素D进入人体,主要有两条路径。
此后,它们都会进入循环,并经过后续转化,才能发挥相应作用。
前一章已经提到,活性维生素D需要通过VDR向细胞传递信号。
维生素D与肠道之间,并不是一条单向通路,而是一组彼此连接的过程。
对口服维生素D来说,肠道是一道吸收关
维生素D是一种脂溶性维生素。
从食物或补充剂中摄入后,它需要在消化过程中与脂类一起被处理,并在胆汁酸等因素的帮助下,形成便于肠道吸收的结构。
研究显示,膳食和补充剂来源的维生素D主要在近端小肠被吸收。
如果小肠黏膜受到明显损伤,脂肪消化吸收受到影响,或者胆汁分泌和流动存在障碍,维生素D的吸收也可能随之受限。
胆汁酸不仅参与脂肪乳化,也帮助脂溶性维生素在肠道中被吸收;而肠道菌群又会参与胆汁酸的后续转化。
也就是说,小肠、胆汁酸和微生物共同构成了口服维生素D所面对的消化环境。
不过,吸收只是维生素D与肠道关系的第一层。
维生素D如何帮助守住肠道屏障?
肠道每天接触大量食物成分、微生物和外来分子。
这项工作依靠的不是一堵静止的墙,而是一套持续更新的屏障系统。
这道边界由黏液层、肠上皮细胞、细胞间连接结构、抗菌分子和局部免疫细胞共同维护。
编辑
第一层,是上皮细胞之间的连接
肠上皮细胞排列成连续的物理边界,细胞之间由紧密连接和黏附连接控制物质通行。
维生素D相关信号与ZO-1、Occludin、Claudin、E-cadherin等连接蛋白的表达和组织有关。
动物和细胞研究发现,VDR信号受损时,部分连接结构会出现紊乱,肠道通透性和炎症易感性也可能增加。
第二层,是上皮的更新与修复
肠上皮是人体更新较快的组织之一。
老化或受损的细胞不断脱落,新的细胞从肠隐窝产生并向上迁移。如果损伤速度超过修复能力,即使连接蛋白仍然存在,屏障也可能出现缺口。
现有机制研究提示,维生素D-VDR信号与上皮细胞存活、损伤后的修复以及自噬过程有关。
VDR缺失的动物模型中,可观察到上皮细胞凋亡增加、隐窝修复能力下降以及炎症加重。
注:这里所说的自噬,可以简单理解为细胞清理受损结构、维持内部秩序的一套机制。它也是上皮细胞和潘氏细胞应对微生物刺激的重要方式。
第三层,是让微生物与肠壁保持合适距离
稳定的肠道屏障,不只是没有裂缝。
覆盖在上皮表面的黏液层、潘氏细胞产生的防御分子,以及Cathelicidin、Defensin、溶菌酶等抗菌物质,共同帮助微生物与肠壁保持适当距离。
维生素D相关信号参与这些抗菌肽的表达,也与潘氏细胞功能及自噬有关。其作用并不是把菌群全部清除,而是帮助宿主维持空间秩序:允许共生菌存在,同时限制潜在致病微生物过度靠近或侵入上皮。
《Gastroenterology》 的一项研究构建了潘氏细胞特异性VDR敲除小鼠。VDR缺失后,潘氏细胞中的自噬相关蛋白 ATG16L1 和溶菌酶减少,分离出的潘氏细胞抑制病原菌生长的能力也随之减弱。
在沙门氏菌感染模型中,这类小鼠出现了更明显的肠道炎症,提示VDR可能通过维持潘氏细胞的自噬与抗菌分泌功能,帮助限制肠道病原菌入侵。
注:这项证据来自动物模型,说明的是VDR信号与宿主抗菌防御之间的机制联系,不能直接理解为口服维生素D能够在人群中清除沙门氏菌或某一种特定细菌。
维生素D调节免疫,不是简单地增强免疫力
肠道不仅负责吸收营养,也是免疫细胞高度集中的场所。
这里每天都要判断:
因此,肠道免疫并不是反应越强越好。
反应不足,可能难以控制入侵者;反应过度,则可能持续释放炎症信号,损伤上皮和周围组织。
维生素D参与的,更接近免疫反应方向和强度的调节。
一方面,它帮助先天免疫完成早期防御
当微生物越过黏液层和上皮屏障后,巨噬细胞会识别并吞噬外来微生物,同时释放炎症信号,招募更多免疫细胞参与清除。
活性维生素D可以通过巨噬细胞上的VDR参与这一过程,包括促进部分抗菌肽表达,并调节细胞因子的释放。病原刺激得到控制后,维生素D相关信号还可能帮助巨噬细胞由偏炎症的状态逐渐转向组织修复,增加IL-10、TGF-β等调节和修复相关信号,同时限制TNF-α、NF-κB等炎症通路持续活跃。
★ 免疫细胞也能在局部“激活”维生素D
2026年国际循证共识指出,肠道巨噬细胞和树突状细胞可表达维生素D活化酶CYP27B1,将进入局部环境的25(OH)D转化为活性形式。
这提示维生素D的一部分免疫调节作用可通过免疫细胞的局部活化实现;在微生物刺激下,这种局部转化可能增强,从而支持局部抗菌和免疫调节功能。
编辑
另一方面,它帮助适应性免疫避免过度反应
树突状细胞承担着呈递信息的工作:它们识别外来成分,再把相关信息传递给T细胞,决定是否启动更有针对性的免疫反应。
机制研究显示,活性维生素D可能抑制树突状细胞过度成熟,使其更倾向于维持耐受性状态;同时减少促炎因子IL-12的产生,增加IL-10等调节性信号。这样可以降低树突状细胞持续推动炎症性T细胞反应的可能。
编辑
在T细胞层面,维生素D相关信号可抑制Th1和Th17细胞的过度活化,减少IL-2、IFN-γ、IL-17和TNF-α等炎症介质,同时促进调节性T细胞,也就是Treg细胞的分化和功能。
Treg细胞可以理解为免疫系统中的“制动机制”。它们帮助身体对正常菌群、食物成分和自身组织保持耐受,减少不必要的持续攻击。
B细胞也可能受到影响。细胞和动物研究提示,维生素D可能抑制部分B细胞增殖、浆细胞分化和免疫球蛋白产生。
但这类作用具有明显的疾病和免疫环境差异,不能简单概括成“维生素D抑制B细胞”。
免疫、屏障和菌群会彼此影响
肠道免疫不是独立工作的。
当屏障受损时,更多细菌成分和抗原可能进入黏膜深层,促使巨噬细胞、树突状细胞和T细胞持续活化;炎症因子增加后,又可能破坏上皮连接、影响黏液层和细胞修复。
与此同时,免疫环境还会改变不同微生物的竞争条件。一些更适应炎症环境的微生物可能获得优势,而部分依赖稳定、低炎症环境的共生菌则可能受到限制。
所以,维生素D的免疫作用更适合被理解为:
在需要时支持抗菌防御,在刺激减弱后帮助炎症逐渐回落,并维持身体对食物、共生菌和自身组织的适度耐受。
维生素D会改变菌群吗?
2025年发表在《Nutrition Review》的一项系统综述,对14项随机对照试验(RCTs)进行了全面分析,共纳入1,458名不同健康状况和补充方案的参与者。
受试者包括健康人,也包括肥胖、结直肠癌、囊性纤维化、HIV感染、艰难梭菌感染、COVID-19和脂肪性肝病患者。
总体上,12项研究报告维生素D补充后肠道菌群发生显著变化,2项未发现明显变化。
主要变化包括:
部分研究发现菌群多样性提高
一些试验显示α多样性或β多样性增加,提示菌群丰富度、均匀度或整体结构发生改变。
注:也有研究未发现多样性变化,因此结果不完全一致。
有益菌可能增加
补充维生素D后,部分研究观察到以下菌群丰度上升:
这些菌通常与抗炎、维护肠黏膜屏障或代谢健康相关。
同时Bacteroidetes/Firmicutes比值也出现升高。该比值被认为是肠道健康的重要生物标志物。
部分潜在不利菌减少
某些试验发现,Proteobacteria、Streptococcus、Dialister 等菌群减少。
但这一结果并未在所有研究中重复出现。
补充维生素D对肠道菌群的影响
doi.org/10.1093/nutrit/nuaf120
BMI 体重指数;IL 白细胞介素;MAFLD 代谢功能障碍相关脂肪性肝病;NAFLD 非酒精性脂肪性肝病;NR 未注册;RCT 随机对照试验;TMAO 三甲胺 N-氧化物。
符号:↔ 无变化;↑ 增加;↓ 减少
菌群也可能反过来影响维生素D
维生素D可能改变菌群生活的环境,菌群也会不断产生代谢物,反过来影响肠上皮、免疫系统以及维生素D相关信号。
目前研究较多的连接点,主要包括短链脂肪酸和胆汁酸。
短链脂肪酸可能影响VDR所处的信号环境
肠道细菌能够发酵人体难以直接消化的膳食成分,产生乙酸、丙酸和丁酸等短链脂肪酸。
丁酸可以为结肠上皮细胞提供能量,同时参与黏液产生、紧密连接、免疫耐受和炎症调节。部分实验研究还发现,丁酸可能增加肠上皮中的VDR及自噬相关蛋白ATG16L1表达,从而影响上皮细胞应对微生物刺激的能力。
这意味着,维生素D信号并不只取决于血液里有多少维生素D,也可能受到局部代谢环境影响。
菌群代谢物如何影响VDR?
在实验性结肠炎模型中,引入菌群发酵产物丁酸后,研究者观察到肠上皮VDR和ATG16L1表达上升,并伴随炎症减轻。
另有细胞和动物研究发现,使用 Lactobacillus rhamnosus GG 或 Lactobacillus plantarum 后,人结肠上皮细胞及单菌定植猪模型中的VDR表达有所增加。
这些结果提示,特定菌株及其代谢产物可能影响VDR相关功能,但证据主要来自细胞和动物研究。
例:肠球菌失调介导维生素D缺乏相关的记忆障碍
还有研究提出一种更上游的可能。
2025年的一项队列研究发现,血清维生素D水平较低的人群,短期和延迟记忆表现相对较差,同时肠道中肠球菌属(Enterococcus)丰度升高。
研究者进一步观察到,肠球菌失衡与部分产短链脂肪酸菌减少及相关代谢功能变化有关,因此推测肠球菌可能是连接维生素D缺乏与记忆障碍的中间因素。
编辑
doi.org/10.1016/j.heliyon.2025.e41969
也就是说,维生素D不足所伴随的健康影响,可能不完全由血液中的维生素D浓度直接造成,也可能经过“菌群失衡—短链脂肪酸代谢改变—肠屏障和免疫炎症异常—脑功能受影响”这一路径传递。
菌群通过胆汁酸,把消化吸收与信号调节连接起来
胆汁酸首先帮助脂肪和脂溶性维生素在小肠中被消化吸收,但它的作用并不止于乳化脂肪。
肝脏合成的初级胆汁酸进入肠道后,会被部分肠道细菌进一步改造。具有胆盐水解酶,也就是BSH活性的微生物,可以对结合型胆汁酸进行脱结合;另一部分细菌再通过7α-脱羟基等反应,参与生成脱氧胆酸、石胆酸等次级胆汁酸。
这些胆汁酸既会影响微生物生存,也能作为信号分子,与FXR、TGR5和VDR等受体通路发生联系。
哪些细菌参与胆汁酸转化?
BSH活性分布在多个菌群中,相关文献提到的菌属包括乳杆菌属、双歧杆菌属、拟杆菌属、Clostridium、Enterococcus、Listeria;
参与7α-脱羟基反应的能力则主要见于部分 Clostridium 及其他厚壁菌门成员。它们可以参与初级胆汁酸向脱氧胆酸和石胆酸等次级胆汁酸转化。
石胆酸及其部分衍生物可以与VDR发生相互作用,这为菌群与维生素D信号之间提供了一条可能的分子连接。
某些菌株可能与血清维生素D变化有关
部分研究还观察到,特定益生菌干预后,血清25(OH)D发生变化。
一项人群干预研究报告,补充具有BSH活性的 Lactobacillus reuteri NCIMB 30242 后,参与者循环25(OH)D水平升高。
动物研究还提供了另一条较早期的线索:菌群可能通过FGF23影响活性维生素D代谢。
无菌小鼠中曾观察到,FGF23升高和1,25(OH)₂D降低;重新引入共生菌后,这一变化可以部分逆转。由于FGF23会参与调节CYP27B1和CYP24A1等维生素D代谢环节,这提示菌群可能通过宿主内分泌通路间接影响活性维生素D水平。
注:这仍是动物层面的机制线索,距离根据人类菌群结果预测维生素D转化能力还有距离。
理解了这套双向联系,接下来要看的,在哪些身体状态下,这种联系更容易变得重要?
炎症性肠病
克罗恩病和溃疡性结肠炎统称为炎症性肠病,也就是IBD。
IBD和普通肠道发炎不一样。普通感染控制以后,炎症通常会逐渐退去;而IBD中的免疫系统可能长期处于过度活跃状态,反复攻击肠道组织。
有的人长期腹泻、食欲下降,能吃的食物越来越少;有的人因为担心症状反复,主动减少乳制品、鱼类或含脂肪的食物,吃得越来越安全,营养来源却也越来越单一。再加上户外活动减少,皮肤合成维生素D的机会也会下降。
这些情况叠加在一起,都可能让维生素D的来源和吸收受到影响。
编辑
而问题的另一面是:维生素D参与维持肠道屏障和免疫稳定。它与受体VDR结合后,可以影响肠上皮细胞连接、组织修复和免疫反应。
简单来说,维生素D不能直接关闭炎症,却可能帮助肠道把屏障守得更稳,让免疫反应不过度持续。
2026年一项前瞻性临床干预研究,纳入48名维生素D水平较低的IBD患者。
编辑
经过12周维生素D干预,每周50,000 IU,参与者的血清25(OH)D平均升高约20 ng/mL,粪便钙卫蛋白平均下降722 μg/g,提示肠道局部炎症减轻,疾病活动评分和生活质量也有所改善。
编辑
这项研究的重要发现,是维生素D可能帮助肠道免疫系统从“过度警戒”转向更具耐受性的状态。补充后,被IgA抗体结合的肠道菌群增加,而被IgG抗体结合的菌群减少。
可以简单理解为:IgA更多参与肠黏膜表面对共生菌的日常管理,帮助免疫系统与菌群保持相对稳定的关系;而较多的IgG结合,有时意味着这些细菌引起了更强的全身性免疫识别。
进一步的多组学分析还发现,维生素D干预后,部分调节性B细胞和调节性T细胞增加,并出现了与免疫耐受。
对于已经确诊IBD的人,如果同时存在长期腹泻、体重下降、饮食限制、小肠受累、肠段切除,或者规律补充后25(OH)D仍然偏低,可以结合肠道菌群检测,进一步观察菌群结构、短链脂肪酸代谢和肠道屏障状态,为后续的营养干预和肠道管理提供参考。
肠易激综合征
IBS并非单一“肠道问题”
与IBD不同,肠易激综合征,也就是IBS,通常不能用明确的结构性损伤来解释全部症状。
腹痛、腹胀、腹泻或便秘的背后,可能涉及肠道运动、内脏敏感性、屏障通透性、低度免疫激活、菌群代谢以及肠-脑轴等多个环节。不同患者的主要驱动因素并不相同。
维生素D结合益生菌干预改善
2025年一项双盲随机安慰剂对照试验纳入31名进入意向性分析的非便秘型IBS患者。干预组连续12周使用包含8个菌株的复合益生菌,并联合每日2000 IU维生素D₃。
干预后,血清zonulin逐步下降,排便频率和粪便性状有所改善;菌群中 Bifidobacterium animalis subsp. lactis 和 Streptococcus thermophilus 增加,Lachnospira减少,同时观察到放线菌门增加、变形菌门减少,以及粪便乳酸和乙酸升高。
但两组的IBS总体症状严重度评分并无显著差异,而且干预同时包含多菌株益生菌和维生素D,无法判断哪些变化由维生素D单独造成。
维生素D可通过VDR参与肠道屏障和免疫调节,也可能影响5-羟色胺相关通路,从而与肠道运动、疼痛敏感和情绪状态发生联系。
部分研究发现,补充维生素D后,腹痛、腹胀、排便异常或生活质量有所改善,但结果并不一致,患者原有的维生素D水平可能影响疗效。
也有病例对照研究没有发现IBS女性与健康女性的25(OH)D存在显著差异,25(OH)D与菌群多样性等指标也没有明显相关性。
哪些情况下,需要结合维生素D和菌群一起看?
因此,对症状反复、饮食限制明显或补充效果不理想的人,可以将血清25(OH)D与菌群报告中的肠道屏障、炎症、产气、短链脂肪酸和肠-脑轴相关指标结合评估。
例如,以腹泻、腹胀为主,同时提示肠道屏障受损、炎症或LPS水平升高、肠道产气升高、变形菌门增加,说明屏障和免疫调节可能是更需要关注的环节,单纯补充维生素D可能并不充分,还需要同时调整饮食和菌群环境。
免疫系统疾病
前一章提到,维生素D参与树突状细胞、Th17细胞和调节性T细胞等免疫通路;肠道菌群及其代谢物短链脂肪酸,也会持续参与免疫系统的训练。
★ 甲状腺:关注抗体、屏障和菌群功能
自身免疫性甲状腺疾病患者中,较低的25(OH)D较为常见。维生素D与VDR结合后,可限制Th17等促炎反应,并支持Treg和免疫耐受。
编辑
一项汇总26项新诊断自身免疫性甲状腺病病例对照研究的分析发现,桥本甲状腺炎人群的Th17水平整体较高,而Treg、FoxP3表达整体较低,支持Th17/Treg失衡可能参与疾病中的免疫异常。
一些研究还报告,较低的 Prevotella 与Th17/Treg稳态异常有关;其他维生素D干预研究则观察到 Akkermansia 和 Bifidobacterium 等菌群变化。但这些结果来自不同人群和不同研究,尚未形成稳定、可重复的“桥本菌群图谱”。 部分临床研究发现补充维生素D后甲状腺抗体下降。
编辑
DOI:10.3389/fendo.2026.1785878
对25(OH)D偏低的患者,纠正不足有助于维护骨骼、肌肉和正常免疫功能。
但如果维生素D水平已经改善,而抗体、甲状腺功能或症状仍未达到预期,不宜只继续增加剂量,还应结合碘、铁、硒、药物使用和疾病阶段进行判断。
硒是脱碘酶(T4转T3)的核心成分,铁是甲状腺过氧化物酶(TPO)的必需辅酶。缺铁或缺硒,即使D水平再高,甲状腺素也无法顺利转化和利用。
若维生素D水平难以上升,或同时存在消化道症状如腹胀、腹泻、便秘等,左甲状腺素吸收不稳定,进一步考虑肠道屏障、消化吸收和菌群环境。
★ 类风湿关节炎:肠道变化可能与全身炎症相连
一项荟萃分析报告称,维生素D摄入量与类风湿关节炎发病率呈负相关。
几项研究表明,较低的血清维生素D水平与较高的类风湿关节炎活动相关。
两项荟萃分析报告称,类风湿关节炎患者的维生素D浓度低于健康对照组,血清25(OH)D与疾病活动呈负相关,特别是DAS28,其中一项分析还包括CRP。
一些针对RA和维生素D缺乏患者的补充研究报告称,治疗12周或3个月后DAS28有所改善,而一项针对早期RA的安慰剂对照试验发现,整体健康状况有所改善,但对DAS28、疼痛或CRP没有显著影响。
类风湿关节炎患者常见菌群多样性下降。早期或未经治疗的患者中,普雷沃氏菌,尤其是Prevotella copri,Collinsella增多较受关注;粪杆菌属等产丁酸菌则可能减少。前两者与肠道通透性、Th17反应和炎症负担有关,产丁酸菌减少则可能削弱屏障和免疫调节。
注:Prevotella 包含40多种不同种,作用不同,例如 P. histicola 在小鼠中反而显示出降低肠通透性、减轻关节炎的潜力。
编辑
doi.org/10.3390/nu18091325
总的来说,目前的证据表明维生素D状态与类风湿关节炎活动之间可能存在负相关。
然而,因果关系仍不确定。不能排除反向因果关系,因为疾病活动度更高的患者可能行动能力降低,阳光照射减少,从而内源性维生素D合成减少。尽管干预研究相对较少且规模通常较小,但维生素D补充似乎对类风湿关节炎有益。
类风湿关节炎患者而言,尤其在伴有腹胀、排便异常、饮食限制或维生素D补充效果不理想时,可结合DAS28、CRP、ESR,关注菌群多样性、Prevotella、Collinsella和产丁酸菌。这种联合评估更容易发现营养、屏障和免疫环境中可能同时存在的问题。
★ 过敏性鼻炎:维生素D可能影响过敏性炎症
过敏性鼻炎常表现为反复打喷嚏、鼻痒、流涕、鼻塞,部分患者还会伴随睡眠质量下降、注意力不集中、头痛等。其本质不仅是鼻黏膜接触过敏原后的局部反应,也涉及免疫系统对外界物质的耐受和炎症调节。
编辑
维生素D与VDR结合后,可影响树突状细胞和T细胞的反应方式,促进Treg分化,抑制IL-6、TNF-α和IL-17等促炎信号,同时增加IL-10等抗炎因子。因此,当维生素D水平不足时,免疫系统可能更容易维持在过度敏感和持续炎症的状态。
对于鼻炎长期反复、常规治疗效果不稳定、户外活动较少,或者同时存在其他过敏性疾病的人,可以配合检测维生素D水平,判断是否存在不足。若偏低,将维生素D作为整体治疗中的辅助环节,可能有助于改善免疫调节环境。
补充效果会受到年龄、性别、基础用药和干预时间等因素影响。研究中的剂量方案不一定适合自行照搬。
糖尿病、慢性肾病、脂肪肝等代谢异常
糖尿病、心血管疾病、脂肪肝等看似发生在不同器官,却常共享一组基础问题:内脏脂肪增加、胰岛素敏感性下降、低度炎症以及肠道代谢环境改变。
维生素D可通过VDR参与胰岛β细胞功能、胰岛素分泌和炎症调节;肠道屏障受损后,LPS等细菌成分进入循环,也可能进一步影响血糖和脂质代谢。有研究认为,维生素D不足可能与胰岛素分泌下降、敏感性降低及菌群功能异常同时存在。
较低的维生素D水平,经常与高血压、冠心病、心力衰竭和心律失常等风险同时出现,可能涉及内皮功能、炎症和心肌代谢。维生素D更适合作为整体代谢状态中的一个评估指标。
★ 糖尿病:血糖、胰岛素抵抗与β细胞功能
维生素D受体存在于胰岛β细胞和多种免疫细胞中,可能通过影响胰岛素分泌、胰岛素敏感性、炎症反应及免疫调节参与糖尿病的发生与进展。
编辑
糖尿病前期人群:
现有随机对照研究提示,补充维生素D可能在一定程度上,延缓向2型糖尿病进展。
一项整合3项随机临床试验的个体参与者数据分析发现,与安慰剂相比,维生素D使新发糖尿病的相对风险下降约15%,3年绝对风险下降3.3%;同时,恢复至正常血糖调节状态的可能性提高约30%。
研究还发现,随访期间平均25(OH)D达到较高水平的人群,糖尿病风险下降更明显。
已经确诊2型糖尿病的人群:
一项纳入39项随机对照试验、共2982名受试者的Meta分析显示,维生素D补充后空腹血糖、糖化血红蛋白、空腹胰岛素及HOMA-IR均有小幅改善,其中糖化血红蛋白平均下降约0.30个百分点。改善在原本存在维生素D缺乏、超重、基线HbA1c较高的人群中相对更明显。
维生素D更适合作为糖尿病综合管理中的缺乏纠正和辅助因素,而不是替代降糖药、胰岛素、饮食控制和运动。
对于糖尿病前期、肥胖、胰岛素抵抗、血糖控制不佳,或长期缺少日晒的人,可以结合血清25(OH)D、空腹血糖、HbA1c、空腹胰岛素及HOMA-IR进行评估,判断是否存在维生素D不足与糖代谢异常叠加的情况。
1型糖尿病患者还需要关注骨量下降和骨质疏松风险,即使维生素D不确定能改善血糖或阻止β细胞功能衰退,也应维持适宜的维生素D储备。
★ 慢性肾病:活化能力下降,关注VD-PTH-钙磷代谢轴
肾脏是维生素D活化的核心器官。经肝脏生成的25(OH)D需要进入肾近端小管,在1α-羟化酶作用下转化为具有生物活性的1,25(OH)₂D,也就是骨化三醇,从而调节钙磷吸收、骨代谢和甲状旁腺激素分泌。
随着慢性肾病进展,肾单位和近端小管功能减少,1α-羟化酶活性下降;同时FGF23升高、磷潴留以及肾小管对25(OH)D摄取减少,都会进一步限制骨化三醇生成。因此,慢性肾病患者不仅容易出现血液中25(OH)D不足,也可能存在有原料但活化不足的情况。
有研究指出,超过80%的慢性肾病患者存在维生素D缺乏,并且缺乏程度通常随肾功能下降而加重。
活性维生素D下降后,肠道对钙的吸收减少,机体会通过升高甲状旁腺激素来维持血钙,长期可能形成继发性甲状旁腺功能亢进,导致骨转换异常、骨痛、骨质疏松和骨折风险增加。
这一系列钙、磷、PTH、FGF23及骨代谢异常,被统称为慢性肾病矿物质和骨异常,即CKD-MBD。
编辑
维生素D还可能通过维生素D受体参与肾脏炎症和纤维化调节。维生素D不足时,对肾素-血管紧张素-醛固酮系统的抑制减弱,可能增加血压、炎症和纤维化信号;同时NF-κB等炎症通路更容易活化。
因此,低维生素D既可能是肾功能减退、蛋白尿、饮食限制和户外活动减少的结果,也可能与肾脏及心血管风险相互叠加。
研究显示,营养性维生素D对慢性肾病早中期患者的PTH控制有一定帮助,但在透析或慢性肾病 5期患者中的效果并不一致。
2025年欧洲共识建议,对慢性肾病、透析及肾移植后人群监测并纠正维生素D缺乏,可将25(OH)D维持在75 nmol/L以上,即30 ng/mL以上;同时应避免单次或间断使用≥100,000 IU的超大剂量,也应避免25(OH)D长期超过150~200 nmol/L,即60~80 ng/mL,以降低高钙血症等毒性风险。
骨化三醇等活性维生素D制剂通常不等同于普通维生素D补充剂,更适合保留给晚期慢性肾病并伴严重、持续进展的继发性甲状旁腺功能亢进者,由医生结合钙磷和PTH水平决定。
★ 维生素D缺乏、慢性肾病、牙周炎
牙周炎不只是牙齿没刷干净,而是口腔菌群失衡与免疫炎症共同作用的结果,常表现为牙龈出血、口臭、牙周袋加深和牙齿松动。
现有观察性研究总体发现,血清25(OH)D水平与牙周炎症程度呈负相关,也就是维生素D较低的人更容易出现牙龈炎症或较严重的牙周指标。美国NHANES III调查也观察到了低维生素D与牙周炎症之间的关联。
慢性肾病患者常存在维生素D活化不足、钙磷代谢紊乱、继发性甲状旁腺功能亢进以及慢性炎症,这些变化可能削弱口腔免疫防御,并影响牙槽骨代谢,使牙周炎更容易发生或加重。
反过来,牙周炎带来的持续炎症和细菌成分入血,也可能增加全身炎症负担,对肾功能产生不利影响。两者共同涉及维生素D不足、氧化应激和免疫反应异常,因此适合放在一起讨论。
编辑
一项系统综述与Meta分析发现,慢性肾病人群的牙周炎患病率约为非慢性肾病人群的2倍,牙周袋深度和牙周附着丧失也更明显。
大型队列研究表明,牙周病与肾功能之间存在双向因果关系,牙周浸润表面积(PISA)增加10%与eGFR降低3.0%相关,eGFR(估计肾小球滤过率)降低10%导致PISA增加25.0%。
目前证据主要来自观察性研究,只能说明慢性肾病、维生素D不足与牙周炎相互关联,还不能证明补充维生素D可以直接治疗牙周炎或延缓肾功能下降。
★ 脂肪肝与肝脏代谢
肝脏是维生素D代谢的重要场所,摄入或皮肤合成的维生素D需要先在肝脏转化为血液中主要检测的25(OH)D。
长期饮酒、脂肪肝和肝功能异常又常伴随饮食问题、消化吸收下降及户外活动减少,因此低维生素D既可能是肝脏疾病的伴随结果,也可能进一步影响炎症和肠-肝轴稳定。
编辑
2024年一项结合临床与动物实验的研究发现,酒精性脂肪肝患者的25(OH)D水平较低,统计分析提示较高的25(OH)D与较低的患病风险相关。
在慢性酒精性肝损伤小鼠中,维生素D缺乏进一步改变肠道菌群,降低肠上皮连接蛋白Occludin和E-cadherin,使屏障稳定性下降;同时增加肝脏和结肠中TNF-α、IL-1β、IL-6、IL-8及CCL2等炎症信号,并增强NF-κB通路活化,从而加重酒精相关肝损伤。
饮酒和维生素D不足共同削弱肠道屏障,使LPS等微生物成分更容易经门静脉到达肝脏,继而放大肝脏炎症。
因此,对于长期饮酒、脂肪肝或肝酶反复升高的人,可以结合维生素D水平、肝功能、血糖血脂以及肠道屏障、LPS和胆汁酸代谢状态进行评估,判断是否存在维生素D不足与肠-肝轴异常叠加的情况。
脂溢性皮炎:反复出油脱屑,关注VD状态
脂溢性皮炎常发生在头皮、眉间、鼻唇沟和耳周等皮脂分泌较旺盛的部位,表现为红斑、油腻性鳞屑和瘙痒。它并不只是“头皮太油”或“清洁不到位”,目前认为其发生与皮脂环境、皮肤屏障、免疫反应以及以马拉色菌为代表的皮肤微生态共同有关。
编辑
维生素D可能通过免疫调节、表皮细胞分化和屏障维持参与这一过程。
一项纳入53名脂溢性皮炎患者和60名健康对照者的研究发现,患者中严重维生素D缺乏的比例为52.8%,高于对照组的25.8%。
另一项纳入71名患者和71名健康对照者的研究得出了更复杂的结果:两组总体维生素D水平差异没有达到统计学显著性,但在脂溢性皮炎患者内部,病情较重者的维生素D水平相对更低。该研究同时发现患者的血清锌水平较低。
神经精神与神经发育问题
★ 成人抑郁:低维生素D可能与多条情绪调节通路相交
抑郁症的发生涉及遗传、压力、生活事件、睡眠、饮食、神经递质和炎症等多重因素。
维生素D受体及相关代谢酶存在于脑组织中,维生素D可能参与血清素、多巴胺和去甲肾上腺素等神经递质调节,同时影响脑源性神经营养因子、神经可塑性、应激轴和神经炎症。
编辑
维生素D与日照不足、抑郁和季节性情感障碍存在关联。
一项观察性研究中,维生素D缺乏者出现临床显著抑郁的可能性约为维生素D充足者的3.5倍。
低维生素D与更高的季节性情绪障碍发生可能性有关;部分研究也观察到冬季维生素D水平和季节性症状之间的关系。
低维生素D与抑郁同时出现,不代表低维生素D一定导致抑郁。反向因果同样可能存在。例如,抑郁的人可能更少出门、更少运动、饮食质量下降,进而导致维生素D水平降低。
研究没有发现冬季补充后症状显著改善,也有小型研究报告高剂量注射后症状改善。
有研究认为,光照疗法的证据更直接。光照可以影响褪黑素节律和生物钟,一些研究显示,晨间强光治疗能减轻疲劳、情绪低落、嗜睡、食欲增加和碳水化合物渴求等季节性症状。
维生素D更适合被看作抑郁评估中的一个可能因素和辅助干预点,对于同时存在长期情绪低落(尤其是秋冬明显加重)、日照不足、疲劳、睡眠问题、肥胖、食欲或排便改变、饮食限制的人,可以结合血清25(OH)D、营养状况及肠道表现进行整体评估。若维生素D偏低,纠正不足可能有助于改善整体健康环境。
★ADHD:低维生素 D 可能与部分症状相关
注意缺陷多动障碍,也就是 ADHD,主要表现为注意力难以维持、活动过多和冲动控制困难。它的发生涉及遗传、脑发育和多种环境因素。
编辑
研究提示,维生素 D 可能参与神经细胞分化、神经营养因子合成、多巴胺系统发育、突触可塑性和神经炎症调节。这些过程与注意力、执行功能和冲动控制有关,因此维生素 D 与 ADHD 之间具有一定的生物学联系。
有临床对照研究发现,ADHD 儿童和青少年的维生素 D 水平低于匹配的健康儿童。
动物研究中,孕期和出生后维生素 D 缺乏的动物也出现了多动、空间学习能力下降和注意调节异常等类似 ADHD 的表现。
★自闭症:维生素 D与早期脑发育和症状特征有关
自闭症的发生涉及遗传和多种环境因素。
一些研究报告,ASD 儿童和青少年的维生素 D 水平相对较低,维生素 D 缺乏可能与更明显的 ASD 症状同时出现。
但这类研究主要属于观察性研究。ASD 儿童可能存在偏食、饮食种类有限、户外活动较少或生活方式差异,这些因素本身也可能导致维生素 D 水平降低。
母体孕期维生素 D 与孩子 ASD 特征有关吗?
Generation R 前瞻性出生队列3937名儿童研究发现,母亲孕期血清维生素 D 水平较高,儿童后来表现的 ASD 特征相对较少(β=−0.07;p<0.008)。
另一项关于孕期维生素 D 缺乏的研究发现,母体孕期维生素 D 水平较低,与儿童 5 岁时更多的 ASD 相关特征、行为问题和较弱的社会能力有关。
对 ASD 儿童而言,发现维生素 D 缺乏时可以进行规范纠正,主要是满足儿童生长发育健康需要。
注:由于研究方法不统一,部分结果存在矛盾,目前不能确认维生素 D 对 ADHD或ASD 具有预防或治疗作用。
年龄增长与特殊生理阶段
★ 衰老,免疫衰老与肠道失衡容易叠加的阶段
有一类人不一定患有明确疾病,但身体环境正在发生较大的生理变化。
一方面,胸腺萎缩,初始T细胞和B细胞减少,身体识别新病原体、应对感染和接种疫苗后的反应能力下降;另一方面,衰老细胞、氧化应激和代谢异常不断积累,使身体长期处于轻度炎症状态。这两种变化分别被称为“免疫衰老”和“炎症性衰老”,与感染、心血管疾病、代谢异常、虚弱及多种年龄相关疾病有关。
维生素D参与先天免疫和适应性免疫调节,能够影响T细胞、B细胞、巨噬细胞、树突状细胞的反应,也参与抗菌肽生成和黏膜屏障维持。
编辑
肠道也会随年龄发生改变。部分研究观察到,双歧杆菌、梭菌目及其他产短链脂肪酸菌减少,而变形菌门和肠杆菌科等机会性菌增多;黏液层、肠道蠕动和屏障修复能力也可能下降。短链脂肪酸减少和屏障通透性升高,会使肠道对免疫系统的调节能力减弱,并可能推动全身低度炎症。维生素D又能通过VDR影响屏障和菌群环境,而部分菌群代谢物也可能反过来支持VDR信号,形成双向联系。
老年人更值得关注维生素D和肠道,并不是因为年龄本身等于缺乏,而是多种风险更容易同时叠加:户外活动日照可能减少、食欲下降、饮食单一、肝肾转化下降、慢性疾病、药物使用以及消化吸收问题。此时,维生素D偏低可能与免疫反应减弱和慢性炎症相互叠加。
★ 更年期,是多种风险容易叠加的阶段
雌激素下降后,腹型肥胖、胰岛素抵抗、血脂异常、心血管和骨量下降风险更容易同时增加。维生素D不足可能进一步放大这些问题,因此更年期女性除了关注骨骼,也应结合腰围、血糖、血脂和维生素D评估整体代谢状态。
若存在腹型肥胖、血糖或血脂升高、脂肪肝、长期饮酒,有些伴有腹胀、排便异常,维生素D补充效果不理想,可以结合菌群报告中的肠道屏障、LPS、短链脂肪酸和胆汁酸代谢进行观察,从而判断干预重点应放在维生素D补充还是改善其他指标,辅助找到优先级最重要的进行干预。
编辑
★ 妊娠也是一种身体环境迅速变化的阶段
妊娠期的免疫耐受、营养需求和母体菌群都会调整,维生素D状态与母婴健康之间的关系也受到关注。
2025年一项日本先导研究将62名孕妇分为每日200、400和1000 IU维生素D₃组,从孕早期开始干预8周。血清25(OH)D随剂量增加,1000 IU组的 Fusicatenibacter 相对丰度在干预后上升。
这是一项样本较小的先导研究,不能据此认定Fusicatenibacter是孕期维生素D疗效标志,也不能把研究剂量直接转化为孕妇的个人补充建议。
总的来说,维生素D之所以反复被提及,并不是因为它能够单独解释这些问题,而是因为它同时参与免疫调节、黏膜屏障、代谢和炎症反应。对血清25(OH)D不足的人,合理纠正低水平具有基础健康价值。
有些疾病直接影响维生素D的消化吸收,有些与肠道屏障和免疫耐受有关,还有一些更多涉及菌群代谢、肠-肝轴或肠-脑轴。接下来,我们将进一步说明具体怎么评估,如何看指标,怎样找到更适合自己的评估重点。
维生素D评估除了看“缺不缺”,还要区分两个层面:一个是身体当前实际处于什么水平,另一个是日常饮食和肠道环境能否提供稳定支持。
血清维生素D,了解体内维生素D的总体水平
血清25-羟维生素D,也就是25(OH)D,是目前评估体内维生素D状态最常用的指标。
但25(OH)D是告诉我们结果,不能单独解释这个结果是怎样形成的。同样是水平偏低,有的人是日照和摄入不足,有的人可能存在吸收障碍、肥胖、肝肾功能异常或药物影响。
如果25(OH)D明显偏低,或规律补充后变化仍不理想,还可以结合血钙、血磷、甲状旁腺激素以及肝肾功能,进一步了解维生素D的吸收、转化和钙磷代谢情况。
身体线索,有没有消化吸收相关问题
检测结果需要与身体表现和既往病史放在一起理解。
因此,两个血清25(OH)D水平相同的人,背后的原因可能不同。只看数值而不看形成原因,容易出现反复补充却难以长期维持的情况。
菌群维生素D营养分值:看饮食和肠道端的支持能力
肠道菌群检测报告中的维生素D评估,往往是根据近期膳食摄入和菌群相关代谢能力计算得到的相对值。
它更多回答的是:
日常饮食能否提供相对稳定的营养来源?
当前菌群和肠道环境是否有利于相关营养的代谢与利用?
菌群检测报告中除了菌群平衡、多样性、核心菌属、有益菌和潜在有害菌,还可以观察肠道屏障、炎症和产气状态,以及丁酸、丙酸、乙酸等短链脂肪酸、次级胆汁酸、维生素与微量营养素代谢、膳食营养结构和相关健康风险。
这些可以帮助理解维生素D所处的饮食和微生态背景。
如何结合血液与肠道菌群检测结果?
血清25(OH)D反映体内当前的维生素D状态;菌群报告中的维生素D营养分值,则是根据近期膳食摄入和菌群相关代谢能力计算得到的相对值。两者观察的是同一营养过程的不同侧面,既有联系,也不能相互替代。
补充剂、日照、体脂、消化吸收、遗传差异、肝肾功能和药物等因素,都可能使两项结果出现不一致,不一致是提示维生素D从摄入、吸收到转化和利用的过程中,可能受到不同因素影响。
如果血清25(OH)D和菌群营养分值都偏低,说明体内维生素D不足,同时日常饮食或肠道端的营养支持也可能不够理想,在合理补充的同时,还应关注饮食结构和肠道环境。若两项结果不一致,则需要结合日照、补充剂使用、身体表现,以及肠道屏障、胆汁酸、短链脂肪酸和菌群结构等信息进一步分析。
这些信息可以帮助判断,当前更需要纠正维生素D不足,还是还应同步改善饮食和肠道环境。至于是否需要益生元、益生菌或其他干预,则应结合完整的菌群报告和个体情况决定。
维生素D干预至少包含两个层面:
对于日照和饮食来源不足、肠道状态相对稳定的人,干预重点可以放在维生素D本身。
如果本身存在排便异常、肠道屏障、胆汁酸、短链脂肪酸或菌群结构方面的问题,则需要在补充维生素D的同时,为它改善进入身体后的肠道环境。
在了解怎么补充之前,我们先看一下维生素D的参考摄入量。
参考摄入量
按照《中国居民膳食营养素参考摄入量(2023版)》:
需要注意,参考摄入量通常指食物与补充剂共同提供的维生素D,并不是在日常饮食之外必须额外服用的剂量。
关于400~600 IU能否满足不同人群的需要,目前仍有讨论。
有随机对照试验提示,对一般成年人而言,每日补充2000 IU维生素D3通常足以使大多数人达到较充分的25(OH)D水平,并具有较好的长期安全性。
作者认为,传统指南这些400-800IU的剂量可能只能满足较低的维持目标,且未充分考虑肤色、地区、肥胖和个体反应差异。
为什么作者主张2000 IU/日?
作者汇总随机对照试验后认为,每日补充2000 IU维生素D3,可以让:
超过99%的普通成年人达到25(OH)D高于20 ng/mL;
超过90%的普通成年人达到25(OH)D高于30 ng/mL。
编辑
doi.org/10.3390/nu16030391
2000 IU/日总体安全吗?
在VITAL研究中,约2.6万名中老年人每日补充2000 IU维生素D,平均持续5.3年,未发现明确的维生素D中毒信号。
2000 IU/日可以自行补充吗?
从现有大型试验看,每日2000 IU对多数成年人具有较好的耐受性。
但同时,文章也提出几个风险提示:
总的来说,低至中等剂量、每日稳定补充,优于不定期使用很大的冲击剂量。2000 IU/日最可靠的价值,是提高并维持维生素D水平、预防缺乏,而不是治疗某一种特定慢性疾病。
推荐摄入量不等于纠正缺乏的剂量
推荐摄入量主要用于维持健康状态,而不是治疗已经发生的维生素D缺乏。如果血清25(OH)D已经明显偏低,仅按照日常参考摄入量补充,未必能够在短期内将水平恢复到合适范围。
此时需要根据血清25(OH)D、年龄、体重、基础疾病和用药情况决定补充剂量,并在一段时间后复查。临床上用于纠正缺乏的阶段性剂量,可能高于日常推荐摄入量,但这并不意味着可以长期自行使用大剂量。
饮食干预:既补充维生素D,也要支持菌群
脂肪鱼类,如三文鱼、鳟鱼、鲭鱼和沙丁鱼,是较重要的天然来源;蛋黄、动物肝脏和部分奶酪中也含有少量维生素D。菌菇主要提供维生素D₂,此外,还可以关注明确标注添加维生素D的牛奶、谷物或其他强化食品。
其他肠道友好型食物
全谷物、燕麦、豆类、蔬菜、水果、坚果和种子虽然通常不是维生素D的直接来源,却能够为肠道菌群提供膳食纤维、抗性淀粉和植物多酚。换句话说,一部分食物负责增加维生素D来源,另一部分食物则负责改善它所处的肠道环境。
编辑
比较实用的饮食思路
一方面增加鱼类、蛋类、菌菇和强化食品,
另一方面保持植物性食物的种类与可发酵纤维。
地中海饮食
地中海式饮食正体现了这种组合思路:鱼类和适量乳制品提供维生素D及优质脂肪,全谷物、豆类、蔬菜、水果、坚果和橄榄油则提供膳食纤维、不饱和脂肪酸与植物多酚。与长期依赖某一种补充剂相比,这类饮食模式更接近对营养摄入、代谢状态和菌群生态的整体管理。
特殊人群
对于饮食限制较多、长期低脂饮食、素食或不摄入强化乳制品的人,还需要特别检查维生素D来源是否长期不足。
天然食物中的维生素D有限,因此当血清25(OH)D已经明显偏低时,仅靠调整食谱往往需要更长时间,必要时仍需配合补充剂。
日晒干预:重要,但人群日照标准不统一
皮肤在UVB照射下可以合成维生素D₃,因此日晒是维生素D的重要来源之一。
但实际合成效率受到季节、纬度、天气、日照时间、肤色、年龄、皮肤暴露面积和生活方式等多种因素影响。隔着普通玻璃晒太阳,也不能获得同样的UVB作用。
编辑
基于UV和维生素D关系的模型研究显示,在夏季、暴露较大皮肤面积的情况下,较短时间的户外暴露可能足以帮助维持维生素D;
但在冬季、中高纬度地区,当暴露皮肤面积只有约10%时,中午可能需要超过45分钟,而且地区间差异较大。
在避免晒伤的前提下增加规律户外活动,并将日晒理解为维生素D来源的一部分,而不是唯一方式。
对于长期居家、夜间工作、衣物遮盖面积较大,或者因疾病和药物需要严格防晒的人群,饮食和补充剂的重要性会相应提高。
补充剂干预:剂量之外,还要选对形式
常见营养补充剂包括维生素D₂和维生素D₃。两者均可提高25(OH)D,但D₃通常提升效率更高、维持时间更长,因此应用更广。
维生素D属于脂溶性维生素,随含有一定脂肪的正餐服用,有利于它形成混合胶束并在小肠吸收。比起偶尔补一次大剂量,规律服用通常更容易获得稳定的血清水平。
还要检查复合维生素、钙片、鱼肝油和单独维生素D制剂是否存在重复摄入。
对于肠道状态相对稳定的人,重点仍是保证来源充足并规律补充,不必额外叠加复杂的菌群干预。
若同时菌群检测提示屏障、短链脂肪酸、胆汁酸和菌群结构异常,则可以在纠正维生素D不足的基础上,进一步考虑膳食纤维、益生元、益生菌或合生元等协同方式。
维生素D + 益生菌
一项随机对照试验系统综述评估了益生菌与维生素 D 联合补充的健康获益,结果表明,与安慰剂、单独补充维生素 D 或单独补充益生菌相比,联合补充可带来更大的健康收益。联合补充可降低疾病严重程度,改善心理健康和代谢指标,包括胰岛素敏感性、血脂异常、低度炎症和氧化能力,并减少医疗服务的使用。
维生素D + 益生菌胶囊 → IBS改善
一项前瞻性、多中心、非干预性真实世界研究评估了三种益生菌联合维生素D对腹泻型或混合型肠易激综合征(IBS-D/IBS-M)的作用。
三种益生菌为:
246名成人连续42天每日服用含3×10⁹CFU益生菌及10 μg维生素D的制剂,具有可评价数据的89名患者中,62.9%于第42天达到症状应答标准,IBS严重程度显著下降。症状改善同时与生活质量提升、焦虑和抑郁减轻及肠道相关焦虑降低密切相关。
维生素D + 益生菌胶囊 → 偏头痛改善
一项随机、安慰剂对照研究显示,成年受试者联合补充益生菌胶囊(每天 4.5×10¹¹CFU)和维生素 D(每两周 50,000 IU)共 12 周后,血清维生素 D 水平显著升高,偏头痛相关指标也得到改善。
该益生菌胶囊包含植物乳杆菌、干酪乳杆菌、嗜酸乳杆菌(L. acidophilus)、保加利亚乳杆菌(L. bulgaricus)、婴儿双歧杆菌、长双歧杆菌、短双歧杆菌和嗜热链球菌(Streptococcus thermophilus)。
维生素D + 益生菌胶囊 → 多样性改变
另一项研究发现,联合补充益生菌与胆钙化醇(维生素 D3)4 周后,肠道菌群的 α 多样性和 β 多样性,菌群组成发生改变,涉及乳杆菌科、拟杆菌属、产菊粉罗斯拜瑞菌(Roseburia inulinivorans)、普雷沃氏菌属等。
所用益生菌包括嗜酸乳杆菌 W22、乳酸乳球菌 W58、短乳杆菌 W63、两歧双歧杆菌 W23 和乳双歧杆菌 W51。
维生素D + 益生菌胶囊 → 精神分裂症改善认知
Mohammadi 等人发现,精神分裂症患者联合补充益生菌和维生素 D 共 12 周后,认知功能显著改善,总胆固醇和 C 反应蛋白水平下降。所用益生菌包括嗜酸乳杆菌、鼠李糖乳杆菌、罗伊氏乳杆菌、副干酪乳杆菌、长双歧杆菌和凝结芽孢杆菌,每种剂量为 2×10⁹ CFU;维生素 D 剂量为每日 400 IU。
维生素D + 益生元
益生元促进维生素D3前体合成
补充益生元,低聚果糖(FOS)和菊粉,可调节肠道菌群,包括多形拟杆菌(Bacteroides thetaiotaomicron)和普拉梭菌(Faecalibacterium prausnitzii),从而促进维生素 D3 前体的生物合成。
维生素D + 菊粉、低聚果糖 → 乳糜泻维生素D改善
一项随机、双盲、安慰剂对照的初步营养干预研究(n=34),每日剂量为800或1000 IU;益生元组额外每日摄入10 g Synergy 1,连续3个月。注:Synergy 1由短链低聚果糖和长链菊粉按1:1比例组成,安慰剂组摄入等量麦芽糊精。
干预3个月后,益生元组血浆25-羟维生素D水平由20.36 ng/mL升至28.57 ng/mL,中位数提高约42%(p < 0.05);维生素D达到最佳水平的儿童比例由17%升至46%。安慰剂组的维生素D水平未出现显著变化。
研究者推测,菊粉和低聚果糖可能通过调节肠道菌群、促进短链脂肪酸生成及改善肠上皮功能,进而提高维生素D的肠道吸收。
维生素D + 槲皮素 → 抗炎、TNF-α 下调
槲皮素是洋葱、葡萄皮和籽中的主要黄酮类物质,也是目前已知抗炎活性最强的天然黄酮之一。维生素 D 与槲皮素都具有抗炎作用,两者可能通过不同的作用环节,共同影响慢性炎症相关通路。
编辑
这种协同配方在缓解肺部疾病(如肺纤维化、严重呼吸道感染等)及全身性慢性炎症中展现出极高的干预潜力。
除了协同抗炎,槲皮素还对维生素D本身具有保护作用。
2021年一项体外研究发现,维生素D对氧气和高温敏感,而槲皮素能够抑制维生素D的分解,减轻高温和pH值升高对维生素D降解的影响。这意味着,从制剂配伍的角度,两者可能存在相互稳定的作用。
日常摄入洋葱、葡萄(带皮)或荞麦等槲皮素来源,同时保持鱼类和蛋类的摄入以补充维生素D。
除了槲皮素外,研究人员还提出维生素 D与黄酮类、多酚类及其他植物化学物质在抗炎、免疫和肠道菌群方面可能具有整体协同或互补作用。橙皮苷、柚皮苷、白藜芦醇、水飞蓟素、姜黄素、儿茶素、可可多酚等都被纳入。
维生素D + 姜黄素 → 脑健康、抗衰老
有研究人员认为,姜黄素可以作为配体与维生素D受体VDR结合,并提到维生素D₃与姜黄素联合,通过VDR及抗炎通路形成作用互补,并具有潜在的脑健康和抗衰老价值。
维生素D + 齐墩果酸 → 支持骨代谢
齐墩果酸是葡萄表面蜡质层等植物来源中的一种三萜类化合物。
齐墩果酸可能通过影响维生素D代谢酶,提高活性维生素D信号,从而与维生素D共同支持骨代谢。
维生素D + 白藜芦醇 → 增强维生素D受体信号
细胞实验显示,白藜芦醇可增强维生素D受体(VDR)介导的转录活性,并与活性维生素D3产生协同作用,促进VDR与视黄酸X受体(RXR)形成异源二聚体,从而加强维生素D相关基因信号。
其可能机制包括提高活性维生素D与VDR的结合、调节RXR活性,以及通过激活SIRT1影响核受体功能。但目前主要属于细胞和分子机制证据,尚不能直接等同于人体临床获益。
维生素D + 其他微量营养素
维生素D + 维生素E → 原发性痛经改善
一项双盲、随机对照试验纳入106名、血清25(OH)D ≤30 ng/mL的15–35岁原发性痛经女性。
编辑
与安慰剂组相比,联合补充后原发性痛经疼痛和经前综合征(PMS)均显著改善:
注:研究未设置“仅维生素D”或“仅维生素E”组,因此只能说明该联合方案有效,不能确定维生素D和维生素E各自的独立作用,或证明二者存在协同效应。
结果也主要适用于维生素D不足的原发性痛经女性,不能直接外推到维生素D水平正常的人群。
维生素D + 维生素B → 睡眠、肠道改善
神经系统疾病患者补充维生素D和维生素B复合物 3 个月后,睡眠得到改善、疼痛感降低、肠道症状缓解。
维生素D + 维生素K → 支持骨代谢
维生素D₃和维生素K的摄入对钙吸收和骨代谢通路很重要。两者在骨骼健康中承担不同任务:
维生素D + 叶酸 → 轻度阿尔茨海默中探索
维生素D₃与叶酸可能分别从神经炎症调节和同型半胱氨酸代谢两个方向支持脑健康,已有研究探索其在轻度阿尔茨海默病中的联合应用。
维生素D + 其他 → 慢性扁桃体炎改善
腺样体–扁桃体肥大是导致原本健康儿童上气道阻力增加和OSA的最常见异常之一。在88名4-12岁、有SDB症状史且预测OSA风险问卷评分较高的儿童中,腺样体和/或扁桃体肥大者维生素D 缺乏的频率,高于无咽部淋巴组织肥大者。
另一项前瞻性试验中,慢性扁桃体炎儿童接受了一种口服补充剂治疗,该补充剂含有黑接骨木、锌、热灭活嗜酸乳杆菌(Lactobacillus acidophilus)、阿拉伯半乳聚糖、维生素D、维生素E、维生素C。
与“观察等待”策略相比,口服该复合补充剂治疗与扁桃体炎和发热发作次数减少、扁桃体体积缩小相关。
维生素D + 镁 → ADHD改善
一项双盲试验纳入 66 名儿童,连续 56 天同时补充维生素 D 和镁。干预后,儿童血清维生素 D 和镁水平升高,部分情绪、焦虑应对和社会行为指标有所改善。
注: 这些研究主要观察生物标志物,目前不能把维生素 D 作为 ADHD 的独立治疗方法,也不应替代规范的行为干预和药物治疗。
维生素D + 药物
维生素D + 常规治疗 → 过敏性鼻炎改善
一项系统综述与荟萃分析纳入5项随机对照试验、共370名过敏性鼻炎患者,评估维生素D作为辅助治疗与常规治疗联用的效果。
常规治疗包括:
维生素D的补充方案为:
亚组分析显示,维生素D联用非糖皮质激素治疗(免疫治疗或抗组胺药)可显著减轻过敏性鼻炎症状(SMD=−0.56,95% CI −0.90−0.90 至 −0.23−0.23),研究间异质性较低(I2=0%I2=0%)。
维生素D联用鼻用糖皮质激素也有症状改善趋势,但合并结果未达统计学显著性,且异质性很高。因此,现有证据提示维生素D可能更适合作为免疫治疗或抗组胺药的辅助方案。
维生素D+免疫检查点抑制剂→ 可能增强肿瘤免疫治疗效果
维生素D可能通过VDR信号调节PD-1、PD-L1和CTLA-4等免疫检查点分子,并影响CD8⁺ T细胞、Treg细胞和Th17细胞的平衡。因此,维生素D可能作为辅助因素,增强针对靶点的免疫检查点阻断治疗。
维生素D+雌激素 → 协同
维生素D可能促进雌激素产生,而雌激素又可能参与维生素D受体在中枢神经系统中的功能。与此同时,维生素D/VDR和雌激素/雌激素受体都能影响Th17细胞、IL-17以及PD-1/PD-L1相关免疫反应。
大豆异黄酮染料木黄酮(genistein)是一种植物雌激素,可以作为雌激素受体的激动剂。染料木黄酮可能通过雌激素受体通路,与维生素D/VDR调节网络发生间接联系,但直接协同作用尚未得到验证。
维生素D+PI3K/AKT/mTOR通路调节剂
维生素D可能通过VDR、PPAR、ESR以及PI3K/AKT/mTOR等通路调节免疫检查点分子。
文中提到的其他潜在联合措施包括:
这些成分可能降低PD-L1表达,或改变Treg/Th17分化,因此可能与免疫检查点抑制剂形成联合方案。
本文我们了解到,维生素D不仅仅是一种帮助钙吸收、维护骨骼健康的营养素,更是参与人体多系统调节的重要因素。
特别是当规律补充后指标依然偏低,需要跳出不断加量的思路,去看肠道微生态、消化吸收能力以及整体的代谢状态。打通了吸收与转化的内部通道,补进去的营养才能更好地转化为身体的防线。
随着“肠-脑轴”、“肠-肝轴”等前沿多组学研究的不断深入,研究人员正在逐渐厘清维生素 D 与肠道微生态之间更深层的调控网络。
未来对维生素 D 的评估将逐步结合个人的饮食结构、肠道菌群及其代谢物、遗传差异、炎症状态和疾病阶段,判断谁更容易缺乏、谁可能存在吸收或转化障碍,以及哪些人更可能从补充中获益。
在这一过程中,肠道菌群检测也可能从简单描述“有哪些菌”,进一步发展为帮助识别营养吸收和代谢环境、预测个体对不同干预措施的反应,并辅助制定更加精准的个体化健康方案。
维生素 D和益生菌、饮食模式及其他干预的协同组合是否稳定有效,仍需要更多长期队列研究和随机对照试验验证,但这代表了精准营养和个体化健康管理的重要方向。
注:本账号内容仅作交流参考,不作为诊断及医疗依据。
本文维生素D 辅助干预作为参考,不宜替代相关疾病规范的行为干预和药物治疗。
主要参考文献
Ullah H. Gut-vitamin D interplay: key to mitigating immunosenescence and promoting healthy ageing. Immun Ageing. 2025 May 19;22(1):20.
Badihi E, Sharifi P, Moradi A, Kamrani A, Hassanzadeh A, Soltani-Zangbar MS, Parsania S, Afandideh F, Ahmadian Heris J, Danaii S, Shahriar B, Sadough M, Chakari-Khiavi F, Teymouri Nobari S, Aghebati-Maleki L, Yousefi M. The effect of vitamin D supplementation and vaginal probiotics on fertility in women with recurrent implantation failure: A randomized clinical trial. Hum Immunol. 2025 May;86(3):111259.
Jahan-Mihan A, Stevens P, Medero-Alfonso S, Brace G, Overby LK, Berg K, Labyak C. The Role of Water-Soluble Vitamins and Vitamin D in Prevention and Treatment of Depression and Seasonal Affective Disorder in Adults. Nutrients. 2024 Jun 17;16(12):1902.
van Rooij D, Mou Y, White T, Voortman T, Jansen PW, Buitelaar JK. Prenatal Vitamin D, Multivitamin, and Folic Acid Supplementation and Brain Structure in Children with ADHD and ASD Traits: The Generation R Study. Nutrients. 2025 Sep 17;17(18):2979.
Abhishek F, Gugnani JS, Kaur H, Damera AR, Mane R, Sekhri A, Singh G, Kaur G. Dietary Interventions and Supplements for Managing Attention-Deficit/Hyperactivity Disorder (ADHD): A Systematic Review of Efficacy and Recommendations. Cureus. 2024 Sep 20;16(9):e69804.
Sailike B, Onzhanova Z, Akbay B, Tokay T, Molnár F. Vitamin D in Central Nervous System: Implications for Neurological Disorders. Int J Mol Sci. 2024 Jul 17;25(14):7809.
Kashiri A, Maghsoudloo N. Exploring the Impact of Vitamin D and Zinc Deficiencies on Seborrheic Dermatitis: A Comparative Study. Health Sci Rep. 2024 Dec 24;7(12):e70283. doi: 10.1002/hsr2.70283. PMID: 39720239; PMCID: PMC11667214.
Sharma M, Kalra S. Vitamin D and Menopause. J Pak Med Assoc. 2024 Apr;74(4):815-817.
Zhang P, Xu Q, Zhu R. Vitamin D and allergic diseases. Front Immunol. 2024 Jul 4;15:1420883.
Akbaş A, Kılınç F, Şener S, Hayran Y. Vitamin D levels in patients with seborrheic dermatitis. Rev Assoc Med Bras (1992). 2023 Jul 17;69(7):e20230022.
Kashiri A, Maghsoudloo N. Exploring the Impact of Vitamin D and Zinc Deficiencies on Seborrheic Dermatitis: A Comparative Study. Health Sci Rep. 2024 Dec 24;7(12):e70283.
Daley DK, Myrie SB. Diabetes and vitamin D: The effect of insulin sensitivity and gut microbial health. Adv Food Nutr Res. 2024;109:160-184.
Dampf Stone A, Batie SF, Sabir MS, Jacobs ET, Lee JH, Whitfield GK, Haussler MR, Jurutka PW. Resveratrol potentiates vitamin D and nuclear receptor signaling. J Cell Biochem. 2015 Jun;116(6):1130-43.
Hosseini MS, Talayeh M, Haghbin Toutounchi A, Hosseini A, Moradi N, Iranshahi S, Abdollahi Aliabadi F. Effect of vitamin D and E supplementation on pain relief and premenstrual symptoms in primary dysmenorrhea: a randomized controlled trial. BMC Womens Health. 2025 Sep 29;25(1):455. doi: 10.1186/s12905-025-04007-4. Erratum in: BMC Womens Health. 2025 Oct 24;25(1):516.
Peng B, Wang W, Gu Q, Wang P, Teng W, Shan Z. Effects of different supplements on Hashimoto’s thyroiditis: a systematic review and network meta-analysis. Front Endocrinol (Lausanne). 2024 Dec 4;15:1445878.
Moreira-Velasco JE, Contreras-Alvarado MF, Rammal H, Rivas D, Duque G. Beyond Calcium and Vitamin D: Exploring Creatine, β-Hydroxy-β-methylbutyrate, Prebiotics and Probiotics in Osteosarcopenia. Nutrients. 2025 Jul 16;17(14):2332.
Pludowski P, Grant WB, Karras SN, Zittermann A, Pilz S. Vitamin D Supplementation: A Review of the Evidence Arguing for a Daily Dose of 2000 International Units (50 µg) of Vitamin D for Adults in the General Population. Nutrients. 2024 Jan 29;16(3):391.
Hua R, Lam CS, Mok VCT, Cheung YT. Association between vitamin D supplement use and cognitive functioning: a longitudinal cohort study. BMJ Open. 2026 Jan 22;16(1):e106050.
Schiza S, Bouloukaki I, Kaditis A, Lombardi C, Bonsignore MR. Vitamin D deficiency: A forgotten aspect in sleep disorders? A critical update. Sleep Med. 2024 Sep;121:77-84.
Wang H, Gong W, Gao J, Cheng W, Hu Y, Hu C. Effects of vitamin D deficiency on chronic alcoholic liver injury. Free Radic Biol Med. 2024 Nov 1;224:220-231.
Cheng K, Hu Y, Li Y, Zhang Y, Wang J, Zhang C. Vitamin D as a central modulator of thyroid diseases: mechanisms and clinical implications. Front Immunol. 2026 Jan 26;17:1748648.
Bilezikian JP, di Filippo L, Bianchi A, Bikle DD, Binkley N, Bouillon R, Fassio A, Frara S, Jones G, Latella G, Laterza L, Graniel IP, Taccari F, Trasciatti S, White JH, Giustina A. Vitamin D in Gut and Systemic Immune Tolerance and in Infections’ Risk: An International Evidence-Based Consensus Statement. Rev Endocr Metab Disord. 2026 Apr;27(2):183-200.
Chen W, Liu L, Hu F. Efficacy of vitamin D supplementation on glycaemic control in type 2 diabetes: An updated systematic review and meta-analysis of randomized controlled trials. Diabetes Obes Metab. 2024 Dec;26(12):5713-5726.
Huang C, Li Z, Shen W, Luo M, Lin F. The bile acid-gut microbiota-vitamin D axis: new insights into biliary atresia. Front Cell Infect Microbiol. 2026 Jun 23;16:1847110.
Zeb F, Osaili T, Hashim M, Alkalbani N, Papandreou D, Cheikh Ismail L, Naja F, Radwan H, Hasan H, Obaid RS, Savvaidis I, AlBlooshi S, Alam I. Effect of Vitamin D Supplementation on Human Gut Microbiota: A Systematic Review of Randomized Controlled Trials. Nutr Rev. 2026 Jun 1;84(6):1157-1166.
谷禾健康
传统治疗的局限
目前焦虑障碍的一线治疗方案主要包括药物治疗(如SSRIs、SNRIs)和认知行为治疗(CBT)。但它们的局限性也同时也存在:例如起效慢(通常需要2-4周)、有效率有限、存在副作用、停药后复发风险较高。
正是因为这些局限,才迫切地需要寻找新的治疗靶点和干预策略。而微生物-肠-脑轴的发现,为焦虑障碍的防治开辟了一个充满希望的新方向。
在深入讨论肠道菌群与焦虑的关系之前,我们先快速了解一下微生物-肠-脑轴:
微生物-肠-脑轴
这是一个连接肠道微生物、肠道和大脑的复杂通信网络,允许肠道微生物与中枢神经系统之间进行双向的信息交流。
简单来说:大脑的活动可以影响肠道菌群的组成,反过来,肠道菌群的变化也可以影响大脑的功能和行为。
这个通信网络主要通过四大通路实现:
了解了肠道和大脑之间存在密切的联系,接下来看看在真实的焦虑患者中,他们的肠道菌群真的发生了改变吗?如果有,具体是哪些细菌发生了变化?
在比较了焦虑障碍患者和健康对照者的粪便菌群组成,发现:
广泛性焦虑障碍 · 菌群特征
Chen等人在《Journal of Affective Disorders》上发表了一项针对36名广泛性焦虑障碍(GAD)患者的研究。研究结果表明,GAD患者的肠道菌群与健康对照者存在显著差异。
编辑
α多样性↓↓
α多样性也就是菌群的丰富度和均匀度:GAD患者的菌群丰富度显著降低,OTU(可操作分类单元)数量明显少于健康对照。这意味着,焦虑患者的肠道菌群多样性更低,而菌群多样性通常被认为是肠道健康的重要标志。
厚壁菌门↓↓ 拟杆菌门和梭杆菌门↑↑ 产丁酸菌↓↓
Faecalibacterium、Eubacterium rectale、Sutterella、Lachnospira、Butyricicoccus等产丁酸的有益菌属在健康对照中富集,而在GAD患者中减少。
Ruminococcus gnavus、Fusobacterium等潜在的促炎菌属在GAD患者中显著增加。
doi.org/10.1016/j.jad.2019.08.014
社交焦虑障碍 · 菌群特征
社交焦虑障碍(SAD)是另一种常见的焦虑障碍,但关于SAD患者菌群特征的研究相对较少。直到2023年,爱尔兰科克大学的Butler团队在《Translational Psychiatry》上发表了一项重要研究,首次采用全基因组鸟枪法测序技术对31名SAD患者和18名性别、年龄匹配的健康对照者进行了研究。
编辑
菌群特征:Anaeromassillibacillus↑↑
研究再次证实了焦虑患者存在独特的菌群特征:
在整体菌群组成(β多样性)上,SAD组与对照组存在显著差异;
编辑
doi.org/10.1038/s41398-023-02325-5
菌群功能:天冬氨酸降解I ↑↑
除了菌群组成的差异,这项研究还首次发现了SAD患者菌群功能的改变。在功能水平上,SAD患者的肠道代谢模块”天冬氨酸降解I“显著升高。天冬氨酸是一种重要神经递质前体,其代谢通路的异常可能通过改变神经递质水平影响大脑功能。
肠道屏障受损
研究人员还有一个重要的发现,SAD患者的肠道屏障完整性受损。肠道屏障受损意味着肠道通透性增加,细菌成分和代谢产物更容易进入血液循环,引发免疫激活和炎症反应,进而影响中枢神经系统功能。
跨研究特征:不同精神疾病共有的菌群标记
越来越多的研究表明,很多精神疾病,包括抑郁症、双相情感障碍、精神分裂症、自闭症等,都存在不同程度的菌群失调。而且,不同疾病之间似乎存在一些共同的菌群特征。
例如,2023年一项纳入了1054名参与者的队列研究发现,产丁酸菌的减少是多种精神疾病共有的特征,包括抑郁症和焦虑症。产丁酸菌的减少与炎症水平升高、神经递质合成异常密切相关。
编辑
doi:10.1001/jamapsychiatry.2021.2573
这些跨研究的共同特征提示我们:菌群失调可能不是某一种精神疾病的特有表现,而是多种精神疾病共享的潜在病理机制。这也解释了为什么焦虑和抑郁常常共病——它们可能有着共同的生物学基础,而肠道菌群失调就是其中之一。
可能有人觉得,相关性不等于因果性,这是科学研究中最重要的原则之一。横断面研究虽然清晰地展示了焦虑障碍与肠道菌群失调之间的关联,但无法确定因果方向:
孟德尔随机化:遗传学的自然实验
孟德尔随机化被称为自然的随机对照试验,是目前在观察性研究中确立因果关系最有力的方法之一。
它的基本原理很简单:根据孟德尔遗传定律,我们的基因是在出生时随机分配的,不受后天环境因素的影响。如果某个基因变异与我们感兴趣的暴露因素(如某种细菌的丰度)相关,而这个基因变异又与结局(如焦虑障碍)相关,那么我们就可以推断暴露因素与结局之间存在因果关系。
突破性发现:9种与焦虑因果相关的细菌属
2024年,上海交通大学的Li等人在《BMC Psychiatry》杂志上发表了一项具有里程碑意义的孟德尔随机化研究,首次在人类中系统地评估了肠道菌群与焦虑障碍之间的因果关系。
这项研究整合了多个大型GWAS数据集,共纳入了18,340名参与者的全基因组数据,分析了数百种细菌属的丰度与焦虑障碍风险之间的关系。通过严格的敏感性分析和多方法验证,研究人员最终确定了9种与焦虑障碍存在因果关联的细菌属。
编辑
这些发现通过了多种敏感性分析的验证,包括MR-Egger截距分析(检测水平多效性)、MR-PRESSO分析(检测异常值)和留一法分析(验证结果的稳定性),所有分析都得到了一致的结果。而且所有工具变量的F统计量均超过10。
这些发现意味着什么?
这项研究第一次在人类中通过遗传学方法确立了特定肠道菌群与焦虑障碍之间的因果关系。
仔细观察这些细菌的特点,会发现一些重要的规律:
4种保护菌属中有3种都是已知的产丁酸菌
Blautia、Butyricicoccus都是产短链脂肪酸菌(详细认识这些菌可以关注谷禾健康以往的文章),它们通过发酵膳食纤维产生丁酸。而丁酸是一种具有多重神经保护和抗焦虑作用的关键代谢产物。
其次,Parasutterella这个菌属在社交焦虑障碍的研究中也出现过——它在健康对照者中富集,而在SAD患者中减少。不同的研究方法(横断面研究和孟德尔随机化)得到了一致的结果,进一步增强了结论的可靠性。
如果多种风险菌同时增加、多种保护菌同时减少,累积的效应就会非常显著。而且,菌群是可以调节的——通过饮食、益生菌等方式增加保护菌的丰度,就有可能实实在在地降低焦虑风险。
现在我们已经知道,特定的肠道菌群确实可以因果性地影响焦虑风险。那么,这些肠道菌群,究竟是如何跨越肠-脑屏障,影响我们遥远的大脑的呢?
经过二十年的研究,科学家们已经基本阐明了菌群影响大脑的六大核心机制:HPA轴调节、免疫调节、色氨酸代谢、短链脂肪酸信号、内源性大麻素系统,以及海马神经发生。
HPA轴调节:应激反应的总开关
下丘脑-垂体-肾上腺轴(HPA轴)是人体对应激反应的核心调控系统,也被称为应激反应的”总开关”。当我们面临压力时,下丘脑会分泌促肾上腺皮质激素释放激素(CRH),刺激垂体分泌促肾上腺皮质激素(ACTH),ACTH再作用于肾上腺皮质,促进糖皮质激素(在人类中是皮质醇)的合成和释放。
编辑
大量的临床前研究表明,肠道菌群在HPA轴的早期发育和持续调节中发挥着关键作用。
无菌小鼠表现出过度的HPA轴反应——面对应激时,它们的皮质酮水平比正常小鼠高出两倍以上,表现出明显的焦虑样行为。而如果在生命早期给无菌小鼠定植正常的肠道菌群,就能逆转这种异常。
这说明,肠道菌群在生命早期为HPA轴的发育设定了基线。如果生命早期菌群失调,就可能导致HPA轴的调定点过高,使得个体在一生中都对应激更加敏感,更容易患上焦虑等应激相关疾病。
免疫调节:炎症是情绪的隐形推手
第二条重要的通路是免疫调节。肠道是人体最大的免疫器官,约70%的免疫细胞位于肠道相关淋巴组织中。肠道菌群是免疫系统最重要的训练者和调节者——它们帮助免疫系统区分”自己”和”异己”,维持免疫激活和免疫耐受之间的微妙平衡。
编辑
当肠道菌群失调时,这种平衡就会被打破,主要表现为两个方面:
这两个因素共同作用,会导致低度慢性炎症。与急性炎症不同,低度慢性炎症没有红、肿、热、痛等明显症状,而是表现为血液循环中促炎细胞因子(如IL-6、TNF-α、IL-1β等)水平的轻度升高。
这种低度慢性炎症正是连接肠道菌群与焦虑障碍的关键桥梁。
越来越多研究表明,焦虑障碍患者的外周血和脑脊液中,促炎细胞因子水平显著升高。
荟萃分析显示,焦虑患者的IL-6和TNF-α水平明显高于健康对照。而且,炎症水平与焦虑症状的严重程度呈正相关。
色氨酸代谢:5-羟色胺的前体争夺战
色氨酸是一种人体必需氨基酸,我们只能从食物中获取。色氨酸之所以重要,是因为它是5-羟色胺(血清素)的前体物质——而5-羟色胺是大脑中最重要的神经递质之一,与情绪调节、睡眠、食欲、冲动控制等多种功能密切相关。
肠道菌群能够影响大脑5-羟色胺水平的关键
人体中90%以上的5-羟色胺是在肠道中合成的,而不是在大脑中。虽然肠道中的5-羟色胺无法穿过血脑屏障进入大脑,但它可以通过多种途径间接影响大脑功能。更重要的是,大脑中5-羟色胺的合成还依赖于从血液中摄取的色氨酸。
进入人体的色氨酸有三条主要的代谢途径
编辑
对于焦虑障碍来说,最重要的是犬尿氨酸途径。多项研究已经证实,焦虑障碍患者的色氨酸代谢存在异常,犬尿氨酸途径过度激活。而Butler等人2025年的研究更是直接证明了社交焦虑障碍患者的犬尿氨酸代谢产物存在改变。
短链脂肪酸:细菌的神奇代谢产物
短链脂肪酸(SCFAs)是肠道细菌发酵难以消化的碳水化合物(膳食纤维)产生的主要代谢产物,主要包括乙酸、丙酸、丁酸三种。
短链脂肪酸可能是目前研究最充分的菌群-肠-脑轴信号分子,也是我们理解菌群如何影响大脑的关键钥匙。它们在肠脑交流中发挥着多重作用:
增强肠道屏障完整性
短链脂肪酸是结肠上皮细胞的主要能量来源,提供约70%的能量。它们可以促进肠道上皮细胞的增殖和分化,增强紧密连接蛋白的表达,维持肠道屏障的完整性,减少肠漏和后续的炎症反应。
调节血脑屏障通透性
短链脂肪酸不仅能保护肠道屏障,还能调节血脑屏障的通透性。研究表明,无菌小鼠的血脑屏障通透性增加,而补充SCFAs可以恢复血脑屏障的完整性。这意味着SCFAs可以保护大脑免受循环中神经毒素的侵害。
免疫调节作用
短链脂肪酸具有强大的抗炎作用。它们可以通过激活G蛋白偶联受体(GPR41、GPR43、GPR109A)和抑制组蛋白去乙酰化酶(HDAC)等途径,调节免疫细胞的分化和功能,抑制促炎细胞因子的产生。
调节HPA轴反应
SCFAs可以直接作用于肾上腺,调节糖皮质激素的合成,也可以通过迷走神经间接调节HPA轴的活性。研究表明,补充乙酸可以降低小鼠的应激反应,减少焦虑样行为。
直接的神经调节作用
SCFAs还可以直接作用于神经系统。它们可以刺激肠神经系统的感觉神经元,通过迷走神经向大脑传递信号;它们可以穿过血脑屏障,直接作用于大脑中的神经元和胶质细胞;它们还可以调节神经营养因子(如BDNF)的表达,促进神经发生和突触可塑性。
编辑
在这三种主要的SCFAs中,丁酸的研究最为充分,也被认为是最重要的有益代谢产物之一。有意思的是,几乎所有的保护菌属都是丁酸的主要产生菌。这完美地解释了为什么这些细菌可以降低焦虑风险——它们通过产生丁酸,发挥多重神经保护和抗焦虑作用。
海马神经发生:大脑可塑性的菌群调控
很长一段时间里,科学界普遍认为成年人类的大脑不会产生新的神经元。但近年来的研究已经证实,在大脑的两个特定区域——海马的齿状回和侧脑室的室管膜下区——神经发生可以持续终生。
海马是大脑中与学习记忆、情绪调节、应激反应密切相关的关键脑区
成年海马神经发生在这些功能中发挥着重要作用。越来越多的证据表明,海马神经发生减少是抑郁症和焦虑障碍的重要病理机制之一,而抗抑郁药和抗焦虑药的疗效也与促进海马神经发生有关。
肠道菌群是成年海马神经发生的重要调控者
多项研究表明,无菌小鼠的海马神经发生显著减少,而菌群定植可以恢复神经发生水平。益生菌干预、粪菌移植和高膳食纤维饮食(通过增加SCFAs产生)都可以促进海马神经发生,增加BDNF(脑源性神经营养因子)的表达。
BDNF是大脑中最重要的神经营养因子之一
它可以促进神经元的存活、增殖、分化和突触可塑性。BDNF水平降低在焦虑和抑郁的发病机制中扮演着核心角色,而几乎所有有效的抗抑郁治疗都会增加BDNF的表达。
几大通路的协同作用网络
这里,我们要强调的是,这六大通路并不是独立工作的,而是相互交织、相互影响,形成一个复杂的调控网络。例如:
这是一个恶性循环:任何一个环节的异常都会波及其他环节,最终导致整个系统的失衡。
但反过来,这也意味着我们有多个干预靶点:改善任何一个环节,都可能打破恶性循环,推动整个系统向健康的方向发展。例如,增加膳食纤维摄入→SCFAs增加→肠道屏障改善→炎症减少→HPA轴恢复正常→焦虑症状缓解。
可能大家更关心的问题是:我们能否通过主动调节肠道菌群来改善焦虑症状?
目前,基于微生物组的焦虑干预策略已经成为精神医学领域最热门的研究且干预逐步显现成效的方向之一。
益生菌:从补充细菌到改善情绪
在过去的二十年里,益生菌在情绪调节方面的作用得到了大量研究的验证:
健康人群的研究表明,益生菌可以降低自我报告的焦虑和抑郁水平,改善情绪认知加工;
在临床诊断的焦虑障碍患者中,益生菌干预可以显著降低汉密尔顿焦虑量表(HAMA)评分,同时降低血清炎症标志物水平;
在社交焦虑障碍患者中,益生菌干预可以改善社交焦虑症状,同时调节大脑边缘系统的活动;
在抑郁症患者中,益生菌作为辅助治疗可以显著增强抗抑郁药的疗效,降低复发风险。
需要特别注意的是,益生菌的作用具有高度的菌株特异性——不是所有的益生菌都有抗焦虑效果,也不是一种益生菌对所有人都有效。乳酸杆菌和双歧杆菌是两类已被用于焦虑治疗研究的细菌。
目前证据最充分的抗焦虑益生菌菌株主要集中在以下几个属:
乳杆菌属
鼠李糖乳杆菌
一项近期研究报告称,在一项包含 70 人的双盲随机对照试验(DB-RCT)中,含有鼠李糖乳杆菌及其他菌株的益生菌胶囊减少了焦虑。
一项动物研究中,据报道,补充鼠李糖乳杆菌可减少焦虑和抑郁行为,甚至可能改变小鼠大脑中 GABA 相关基因的活性。
瑞士乳杆菌
一项近期动物研究中,据报道,补充瑞士乳杆菌可减少大鼠与焦虑相关的行为。
相关研究还报道称,补充瑞士乳杆菌可保护小鼠免受西式饮食对焦虑行为造成的负面影响。
植物乳杆菌
一项包含 84 名肠易激综合征(IBS)患者的双盲随机对照试验(DB-RCT)中,含有植物乳杆菌的益生菌补充剂降低了与肠道相关的焦虑。
一项动物研究中,据报道,长期摄入植物乳杆菌可提高小鼠体内多巴胺和血清素水平,并减少焦虑样行为。另有报道称,它还能降低促炎性细胞因子,并提高经历早期生活压力的小鼠体内抗炎性细胞因子水平。
双歧杆菌属
长双歧杆菌
长双歧杆菌可减轻感染性结肠炎小鼠的焦虑样行为,这些作用似乎是通过迷走神经通路介导的。
一项人体研究中,据报道,连续 30 天每日服用瑞士乳杆菌和长双歧杆菌,可降低 25 名受试者的焦虑、敌意以及与压力相关的激素皮质醇水平。
产丁酸菌属
国际益生菌和益生元科学协会(ISAPP)推荐的益生菌剂量范围是每天至少摄入109-1010 CFU。需要坚持服用至少4-8周,因为菌群的改变需要时间。
益生元:喂养好细菌
如果说益生菌是直接补充好细菌,那么益生元就是喂养好细菌的食物。
益生元是人体无法消化的碳水化合物,但可以被肠道中的有益菌选择性发酵利用,促进它们的生长和代谢活性。
最常见的益生元包括:低聚果糖(FOS)、低聚半乳糖(GOS)、菊粉(Inulin)、抗性淀粉(Resistant Starch)、母乳低聚糖(HMOs)。
多项临床研究证实了益生元的抗焦虑作用。
例如,2015年的一项研究发现,健康志愿者连续3周服用低聚半乳糖(GOS)后,对消极情绪刺激的注意力偏向显著降低,这一效应与抗焦虑药的效果类似。
另一项研究发现,菊粉型果聚糖可以显著降低抑郁症患者的抑郁和焦虑评分,同时增加粪便中双歧杆菌的丰度。
值得注意的是,益生菌和益生元常常联合使用,这种组合被称为合生元。合生元可以同时发挥补充有益菌和喂养有益菌的双重作用,效果往往优于单独使用益生菌或益生元。
饮食调节
饮食是偏生活方式的菌群干预。饮食是塑造肠道菌群组成和功能的最重要的环境因素,其影响远远超过我们大多数人的想象。
研究表明,饮食的改变可以在短短几天内改变肠道菌群的组成。而且,饮食对菌群的影响是长期的——长期的饮食习惯会塑造出相对稳定的菌群特征。因此,通过调整饮食来改善菌群,进而改善情绪,是一种经济、安全、可持续的干预手段。
地中海饮食——情绪友好型饮食
地中海饮食泛指地中海沿岸国家的传统饮食模式,其核心特点包括:丰富的植物性食物(蔬菜、水果、全谷物、豆类、坚果)、橄榄油作为主要的脂肪来源、适量的鱼类和家禽、少量的红肉、适量的乳制品(主要是发酵乳制品,如酸奶、奶酪)、少量的红酒(随餐饮用)。
大量的流行病学研究表明,坚持地中海饮食与更低的抑郁和焦虑风险显著相关。
2017年著名的SMILES随机对照试验更是直接证明了饮食干预对抑郁症的治疗效果,饮食干预组有32%的患者达到了临床缓解标准,而对照组只有8%。
那么,地中海饮食为什么能改善情绪呢?
肠道菌群在其中发挥了关键的中介作用。
基于目前的科学证据,我们给出以下改善情绪的饮食建议:
应该多吃的食物
– 各种颜色的蔬菜(每天至少500克)
– 新鲜水果(每天200-350克)
– 全谷物(燕麦、糙米、藜麦、全麦面包等)
– 豆类(黄豆、黑豆、红豆、鹰嘴豆、扁豆等)
– 坚果和种子(核桃、杏仁、亚麻籽、奇亚籽等,每天一小把)
– 富含脂肪的鱼类(三文鱼、鲭鱼、沙丁鱼、凤尾鱼,每周2-3次)
– 发酵食品(无糖酸奶、开菲尔、泡菜、纳豆等)
– 橄榄油(作为主要的烹饪用油)
– 香料(姜黄、生姜、大蒜、肉桂等)
应该少吃的食物
– 加工食品(薯片、饼干、方便面、火腿肠等)
– 含糖饮料(可乐、果汁饮料、奶茶等)
– 精制碳水化合物(白米饭、白面包、面条、糕点等)
– 油炸食品和高脂肪食物
– 加工肉类(培根、香肠、火腿等)
– 过量的酒精和咖啡因
西式饮食模式与认知功能下降和情绪症状风险增加密切相关,长期高脂高糖低纤维的饮食会显著降低菌群多样性,减少产丁酸菌,促进有害菌生长,导致肠漏和慢性炎症。
植物提取物
一些植物提取物、氨基酸、脂肪酸和矿物质也被研究用于缓解焦虑。不过,这类干预的证据强度差异很大,可以作为辅助性的情绪调节工具。
有较多小型人体研究支持的
★ Kava(卡瓦)
卡瓦是一种生长在南太平洋岛屿的植物,通常作为茶或补充品食用。在几项人体研究中,卡瓦被报道可改善焦虑、紧张、不安、失眠、睡眠质量和情绪状态。
在动物中,卡瓦的抗焦虑效果被报道相当强大,甚至可能与苯二氮卓类药物(一类常用治疗焦虑症的药物)的效果相媲美。
一项对多种草本抗焦虑药进行比较的研究得出结论,卡瓦在减轻焦虑方面可能比大多数其他草本补充剂更有效。
机制上,Kava 可能增强 GABA-A 受体活性,并影响去甲肾上腺素摄取,也就是说“降低神经兴奋性、增强抑制性神经传递”。
注:需要特别注意的是,Kava 曾被报道与肝毒性相关,尤其可能与其他药物或肝脏负担叠加,因此有肝病、饮酒较多或正在服药的人不应自行使用。
★ 薰衣草
人体研究中,薰衣草被报道可改善焦虑和睡眠质量。它不一定是直接治疗焦虑障碍,而可能是通过改善紧张感和睡眠质量,间接降低焦虑体验。
在动物研究中,薰衣草精油中的几种成分(芳樟醇、龙脑)被报道能略微增加抑制性神经递质GABA的活性,这可能是其所谓减缓焦虑效果的基础。
编辑
★ 银杏叶
银杏是一种药用植物,广泛应用于中医,用于抵消与年龄相关的认知衰退,以及其他传统用途。
一项针对107名人类的研究,每天补充240或480毫克银杏叶连续4周,被报告显著减轻焦虑症状(相比无效安慰剂治疗)。
银杏提取物也被报道能减轻老年患者的焦虑、抑郁和痴呆症状。
一些动物研究的早期证据表明银杏叶可能在大鼠中表现出某些抗焦虑特性。
注:需要注意的是,银杏可能影响凝血功能,正在使用抗凝药、抗血小板药、准备手术或有出血风险的人群,不应自行使用。
★ 洋甘菊
洋甘菊中含有黄酮类成分芹菜素。洋甘菊更接近温和的神经镇静和压力调节方向。
两项分别为57名和61名参与者的人体研究报告,洋甘菊提取物可降低轻度至中度的焦虑、抑郁和压力。
据报道,服用标准补充剂量的着皮生素能减轻焦虑,同时不引起类似镇静的副作用。
一些早期证据表明,芹菜素可能通过与GABA受体结合来增强GABA通讯(类似于苯二氮卓类药物的作用方式)。有报道称,它还可能抑制谷氨酸家族的NMDA受体。
注:需要区分的是,标准化洋甘菊提取物和日常饮用的洋甘菊茶并不等同,茶饮中的有效成分剂量通常更低,不能简单理解为“喝洋甘菊茶就能治疗焦虑”。
★ 柠檬香蜂草
柠檬香蜂草传统上常作为镇静类草本茶饮使用。
根据多项人体用户研究,300~1600毫克的柠檬香蜂草提取物补充剂在20名、18名、20名和20名参与者的人体研究中被报告能改善焦虑、压力、失眠、记忆、情绪和认知处理。
其主要活性成分之一是迷迭香酸,可能通过抑制 GABA 分解相关酶,间接提高 GABA 水平。由于 GABA 是大脑中最重要的抑制性神经递质之一,这一机制可以解释它为何可能带来放松和抗焦虑效果。
编辑
★ 紫色西番莲
紫色西番莲是一种原产于美国东南部的开花藤本植物。
一项针对18名广泛性焦虑症患者的早期研究结果表明,紫西番莲可能有助于减轻焦虑,类似于苯二氮卓类药物(一种常用于治疗焦虑及其他精神疾病的药物)。
另一项研究报告称,手术前补充紫色西番莲能减轻30名手术患者的焦虑。
一项纳入 30 人的双盲随机对照试验(DB-RCT),单次服用 5,000 毫克紫花西番莲可降低公众演讲后的心率;而连续 6 天服用 500 毫克,则被报告可在公众演讲任务期间降低血压。
机制上,动物研究提示它可能影响海马区 GABA-A 和 GABA-C 通路。整体来看,可以理解为“降低应激反应和生理唤醒”的辅助工具,但现有人体样本量仍偏小。
有初步人体研究但证据仍不足的
► 南非醉茄 / 印度人参
南非醉茄可能不是直接作用于某一个焦虑症状,而是通过降低慢性压力负荷来改善焦虑状态。
据报道,51名更年期综合征女性的研究中,南非醉茄可以减少情绪波动和焦虑,一些研究人员甚至提出,南非醉茄提取物可能有助于在传统的精神病学实践中治疗焦虑症。
动物研究还提示,它的抗焦虑作用可能与劳拉西泮类似。
其他研究报告称,在治疗焦虑和社交隔离诱导行为时,其作用类似于情绪稳定剂。
编辑
► 茶氨酸 / 绿茶
L-茶氨酸是一种存在于白茶、红茶和绿茶中的氨基酸,因其镇静效果广受推崇。
一些早期研究也支持这一点。例如,在两项分别包含 12 名和 14 名参与者的研究中,受试者在完成脑力任务后服用 L-茶氨酸。研究报告称,L-茶氨酸有助于缓解压力症状,同时还能降低心率和血压。
一项针对20名精神分裂症患者的研究(DB-RCT)报告每日补充L-茶氨酸能减轻焦虑,20名健康个体中也显示有促进放松的效果。
动物研究提示,L-茶氨酸可能提高 GABA、多巴胺和 5-羟色胺等神经递质水平。
► 积雪草
积雪草(Centella asiatica)是一种生长在南亚湿地的植物,传统上既被用作食用蔬菜,也被用作药用草本。
在一项安慰剂对照研究中,积雪草被报告可抑制 40 名健康成年人中的惊跳反应。
一些大鼠研究报告称,积雪草及其主要成分积雪草酸(asiatic acid)可减少与焦虑相关的行为。
一项大鼠研究的早期证据提示,积雪草可能通过激活谷氨酸脱羧酶发挥作用。该酶能够提高大脑中的 GABA 水平。
注:证据有限但机制上值得关注,人体焦虑研究仍较少。
► 黄芩类草本
它们含有具有生物活性的黄酮类化合物,这类成分被认为具有较强的抗氧化作用。
一项小规模人体研究显示,与安慰剂相比,美洲黄芩被报告可减轻 19 名成年人的焦虑。
一些动物研究证据提示,补充中国黄芩可能有助于减少压力诱发的焦虑样行为,并降低血液中的皮质酮水平。
虽然这类草本中含有许多值得研究的不同化合物,但汉黄芩素(wogonin)被认为是中国黄芩中的主要活性黄酮。有研究报告称,它可减少小鼠的焦虑样行为,并增强 GABA-A 受体活性。
编辑
► 缬草
缬草(Valeriana officinalis)是一种开花植物,历史上曾用于香水制作,如今常以茶饮或根部提取物的形式作为补充剂使用。
根据一项初步人体研究,在 33 名健康个体中,每天两次补充 500 mg 缬草、持续 60 天,被报告可减轻焦虑、压力和抑郁。
一些动物研究也报告称,缬草可能有助于减少焦虑样行为。
机制上,缬草可能增强 GABA-A 信号,因此更接近“睡眠—镇静—焦虑缓解”路径。
注:由于它可能带来嗜睡,也可能与镇静催眠药、酒精或抗焦虑药叠加,不建议自行混用。
补充剂
► 5-羟色氨(5-HTP)
5-HTP 是一种天然存在的氨基酸。大脑会利用它来合成血清素,而血清素是一种神经递质,通常被认为与情绪调节密切相关。
一项针对 15 名年轻成年人的人体研究中,受试者因单恋而出现焦虑,连续 6 周补充 5-HTP 后,他们的焦虑有所减轻,这可能与血液中 BDNF 和血清素水平升高有关。
另一项人类研究报告称,仅一次200毫克的5-HTP剂量即可部分缓解24名惊恐障碍患者的惊恐发作。
注:需要强调的是,5-HTP 可能与 SSRIs、SNRIs、MAOIs 等抗抑郁药发生相互作用,如正在服用精神科药物请遵医嘱。
► 镁
镁与神经兴奋性、NMDA 受体、HPA 轴和肌肉紧张都有关。
一些病例研究报告称,开始补充镁后一周内,抑郁、焦虑和睡眠问题有所改善。
注:这些结果只基于少数个体使用者,仍需要在健康人群中开展更大规模的临床试验,才能确认这些效果。
一些研究人员认为,镁可能具有抗焦虑作用,这或许与它能够降低 HPA 轴的活性有关。HPA 轴是大脑中参与压力调节的重要系统之一。此外,镁还可能通过抑制 NMDA 受体发挥作用。
► 鱼油 / Omega-3 脂肪酸
Omega-3 脂肪酸主要包括 EPA 和 DHA,与炎症、神经可塑性和细胞膜功能密切相关。
在一项包含 49 人的研究中,Omega-3 脂肪酸水平较低与社交焦虑水平较高有关。
在一项针对 34 名健康人的研究中,每天补充 2.5 克 Omega-3 被报告可减轻焦虑症状,同时降低IL-6水平。IL-6 是一种重要的促炎性细胞因子。
另一项研究报告称,补充 3 克 Omega-3 可减轻 11 名物质滥用者的焦虑。
一项大鼠研究中,DHA(一种 Omega-3 脂肪酸)被报告可降低 TNF-α、IL-6 和一氧化氮合酶 的水平。这可能说明,DHA 的部分作用或许与减轻炎症有关。
其他动物研究报告称,EPA(另一种 Omega-3 脂肪酸)可能有助于增加海马体神经发生。
其他干预手段
除了上述主要方法,还有一些新兴的干预手段也在研究之中,包括粪菌移植(将健康捐赠者的粪便菌群移植到患者肠道中)、后生元(益生菌的代谢产物或灭活菌体成分)、噬菌体疗法(利用噬菌体精准清除有害菌)、菌群定向培养(从患者自身肠道中分离有益菌,体外扩增后回输)等。这些技术目前大多还处于研究阶段,但未来可能会成为重要的治疗手段。
基于的研究探索和临床实践,不同人群的菌群组成、肠脑轴功能以及对干预的反应存在较大的差异。因此,基于微生物组的焦虑干预需要个性化。
儿童与青少年:发育中的菌群-肠脑轴
儿童和青少年时期是大脑发育的关键时期,也是肠道菌群建立和稳定的关键时期。研究表明,生命早期的菌群失调(如剖腹产、配方奶喂养、抗生素使用等)与儿童和青少年时期的焦虑、抑郁、自闭症、注意力缺陷多动障碍(ADHD)等精神疾病风险升高密切相关。
对于儿童和青少年的焦虑干预,菌群-肠脑轴具有特别重要的意义:预防优先、早期干预效果更好、安全性更高。当然,儿童和青少年的菌群干预也需要特别注意安全性和适宜性,剂量需要根据年龄调整,饮食干预需要考虑生长发育需求。
老年人:菌群衰退与情绪健康
随着年龄的增长,肠道菌群会发生一系列特征性的改变,被称为”菌群衰老”:菌群多样性显著降低、有益菌(如双歧杆菌属、产丁酸菌)丰度显著减少、潜在致病菌丰度增加、菌群的代谢功能下降,短链脂肪酸产生减少。
菌群衰老与老年人的多种健康问题密切相关,包括免疫功能下降、炎症水平升高、认知功能衰退、虚弱等。同时,也与老年人的焦虑和抑郁风险升高密切相关。65岁以上老年人中,焦虑障碍的患病率也在上升。
对于老年人的焦虑干预,重点包括:增加膳食纤维和发酵食品的摄入、适当补充益生菌、规律运动、社交活动、避免不必要的药物使用。
共病躯体疾病患者:特殊考虑
焦虑障碍常常与多种躯体疾病共病,尤其是胃肠道疾病、自身免疫病、代谢疾病等。
肠易激综合征(IBS)
一定比例IBS患者伴有焦虑或抑郁症状,而焦虑反过来又会加重IBS症状,形成恶性循环。菌群干预对IBS患者具有双重益处——既可以改善胃肠道症状,又可以改善焦虑情绪。
炎症性肠病(IBD)
IBD患者的焦虑和抑郁患病率高于健康人。这些患者存在严重的菌群失调,改善菌群不仅有助于控制肠道炎症,也有助于改善情绪症状。
肥胖和代谢综合征
肥胖和代谢综合征患者的焦虑和抑郁风险显著高于正常体重人群。同时,肥胖人群通常伴有显著的菌群失调。对于肥胖伴焦虑的患者,菌群干预同样具有双重益处。
性别差异:为什么女性更容易焦虑?
焦虑障碍存在显著的性别差异——女性的患病率是男性的2倍左右。这一差异的原因是多方面的,包括激素、社会心理因素、遗传等。近年来的研究发现,肠道菌群的性别差异可能也是其中一个重要的原因。
肠道菌群中含有大量的β-葡萄糖醛酸酶,可以将结合态的雌激素重新转化为活性态的游离雌激素,增加体内的雌激素水平。这一过程被称为“雌激素的肠肝循环”。菌群失调时,β-葡萄糖醛酸酶活性改变,会影响雌激素的正常代谢,导致雌激素水平异常。
编辑
雌激素可以通过多种途径影响大脑功能和情绪:它可以调节5-羟色胺、多巴胺等神经递质的合成和代谢,可以调节HPA轴的活性,可以影响神经可塑性和炎症反应。因此,菌群失调导致的雌激素代谢异常,可能是女性更容易患上焦虑和抑郁的重要原因之一。
这也解释了为什么女性在一些特殊的生理时期,如经前期、产后、更年期,更容易出现情绪问题。对于女性的焦虑干预,需要特别考虑激素与菌群的相互作用。
尽管微生物-肠脑轴的研究已经取得了很大的进步,但是这个领域仍然非常年轻,还有很多未知的问题和挑战等待我们去解决。目前大多数研究的样本量还不够大,方法异质性较高,因果推断仍然存在困难,动物到人的转化也存在鸿沟。
客观地说,基于菌群的焦虑干预距离真正成为常规临床治疗手段,可能还需要几年甚至更长的时间。不过,这并不意味着我们现在什么都做不了。恰恰相反,基于现有的证据已经足够支持我们在日常生活中做出一些改变,来改善我们的菌群和情绪。
最后,想给给读者一些实用建议
基于目前的科学证据,我们提出以下几点实用建议:
1
优先调整饮食
这是最重要、最有效、也最安全的干预手段。饮食调整不需要完美,只需要开始,哪怕只是每天多吃一份蔬菜,或者每周多吃一把坚果,都会对你的菌群和健康产生积极的影响。
2
谨慎选择益生菌
如果你想尝试益生菌,请注意以下几点:
– 选择有临床研究证据支持的菌株,而不是随便买。
-基于自己的肠道菌群构成和菌群状态选择合适的益生菌。
– 注意活菌数量,一般建议每天至少摄入10⁹-10¹⁰ CFU
– 选择靠谱的品牌,注意产品的保质期和储存条件
– 坚持服用4-8周,菌群的改变需要时间
– 如果服用后出现严重的胃肠道不适,应该停止使用并咨询医生
需要特别提醒的是:益生菌不是万能药,不能替代正规的心理治疗和药物治疗。如果你患有严重的焦虑障碍,一定要首先寻求专业精神科医生和心理医生的帮助。
3
改善生活方式
除了饮食,很多其他的生活方式因素也会影响肠道菌群和情绪:
– 规律运动:运动可以显著增加菌群多样性,促进有益菌生长,同时本身就是有效的抗焦虑手段;
– 充足睡眠:睡眠不足会严重破坏菌群平衡,增加炎症水平,加重焦虑症状;
– 压力管理:长期压力会导致菌群失调,而菌群失调又会加重压力反应,形成恶性循环。学习冥想、深呼吸、正念等压力管理技巧,打破这个恶性循环;
– 接触自然:多去户外,接触土壤和植物,可以增加环境微生物暴露,改善菌群多样性;
– 避免不必要的抗生素:抗生素会严重破坏肠道菌群,除非医生认为确实必要,否则不要随意使用。
4
关注自己的肠道感受
注意观察什么食物让你感觉舒服,什么食物让你感觉不舒服。每个人的菌群都是独特的,没有一种饮食适合所有人。学会倾听你身体的声音,找到最适合你自己的饮食和生活方式。
5
寻求专业帮助
如果有严重的胃肠道问题或者情绪问题,要寻求专业医生或专业的检查,包括消化、精神、营养等相关的检查和咨询等。菌群干预可以作为辅助治疗手段,但不能替代正规的医学治疗。
肠道菌群——心理健康的新边疆
一个多世纪前,Sigmund Freud 创立并发展精神分析学时,人们开始尝试从童年经验、潜意识冲突和内在心理世界中理解精神痛苦。
约七十年前,第一代抗抑郁药的出现,又让我们看到神经递质、神经环路和大脑生物学在情绪障碍中的重要作用。
今天,随着微生物—肠—脑轴研究的不断深入,我们对焦虑、抑郁等精神健康问题有了更加立体的认识:情绪并不只是“大脑内部”的事件,它也与免疫、代谢、内分泌、肠道屏障以及数以万亿计的肠道微生物密切相关。
这不是对过去理论的简单否定,而是一次重要的拓展。我们越来越清楚地看到,大脑并不是孤立运行的指挥中心,而是与全身各系统持续对话的复杂网络。精神健康也不应被简单归为心理问题或大脑问题,而应被理解为心理、神经、免疫、代谢、环境和生活方式共同作用的结果。肠道菌群正是这个复杂系统中一个重要而活跃的参与者。
编辑
微生物—肠—脑轴的研究,为焦虑、抑郁和压力相关问题的预防与干预提供了新的思路。合理饮食、充足睡眠、规律运动、压力管理,以及在专业指导下使用益生菌、益生元或其他微生态干预方式,未来都可能成为精神健康综合管理的一部分。但我们也需要保持科学的谨慎:肠道菌群不是解释一切的万能答案,菌群干预也不能替代规范的心理治疗、药物治疗和医学评估。
对行业而言,肠道菌群研究最大的价值,不在于制造新的概念热潮,而在于推动我们以更系统、更精准、更个体化的方式理解人体健康。未来真正有价值的微生态产品和干预方案,必须建立在高质量临床证据、精准的检测结果、清晰作用机制和真实人群获益之上。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Xiong RG, Li J, Cheng J, Zhou DD, Wu SX, Huang SY, Saimaiti A, Yang ZJ, Gan RY, Li HB. The Role of Gut Microbiota in Anxiety, Depression, and Other Mental Disorders as Well as the Protective Effects of Dietary Components. Nutrients. 2023 Jul 23;15(14):3258.
Butler, M.I., Bastiaanssen, T.F.S., Long-Smith, C. et al. The gut microbiome in social anxiety disorder: evidence of altered composition and function. Transl Psychiatry 13, 95 (2023).
Butler, M.I., Kittel-Schneider, S., Wagner-Skacel, J. et al. The Gut Microbiome in Anxiety Disorders. Curr Psychiatry Rep 27, 347–361 (2025).
Ding, H. “Gut microbiota and anxiety: an exploration of key findings. J Depress Anxiety.” 2017
Lan, J., Wang, J., Huang, S. et al. Neuropeptide SP protects against colitis and linked anxiety-like behavior through the putative roles of gut microbiota and metabolite inositol. Nat Commun 17, 295 (2026).
Shen H, Wang SY, Zhao YY, Zhou JL, Zhao J and Zhu WK (2026) Brain-gut-microbiota axis: a review on the bidirectional regulatory mechanisms between gut microbiota and brain and their disease interactions. Front. Microbiol. 17:1768891.
Kumar, Akash, et al. “Gut microbiota in anxiety and depression: unveiling the relationships and management options.” Pharmaceuticals 16.4 (2023): 565.
karger.com/books/book/382/chapter/5564732/Is-Anxiety-Associated-with-the-Gut-Microbiota
selfhacked.com/blog/natural-treatments-anxiety/
Cao, Y., Cheng, Y., Pan, W. et al. Gut microbiota variations in depression and anxiety: a systematic review. BMC Psychiatry 25, 443 (2025).
Li, Jianbing, et al. “Association between gut microbiota and anxiety disorders: a bidirectional two-sample mendelian randomization study.” BMC psychiatry 24.1 (2024): 398.
谷禾健康
当一个孩子长期“吃了也不长”、身高曲线逐渐往下掉,大部分家长可能首先会想到是不是缺钙、缺锌,或者是不是肠胃吸收不好。事实上,儿童发育迟缓是一个比“矮一点”更复杂的问题。
儿童发育迟缓(stunting)诊断标准为年龄别身高(Height-for-age, HFA)低于同年龄、同性别儿童生长曲线中位数减去2个标准差(-2SD)。它不是简单的“个子小”,而是生命早期长期线性生长受限的表现。
传统营养支持仍是基础,但越来越多研究提示,营养不足、反复感染、环境性肠功能障碍(EED)、肠道菌群成熟延迟、肠屏障受损和宿主生长信号改变,可能共同参与儿童发育迟缓的形成与持续。
本文基于重点梳理儿童发育迟缓与肠道菌群的证据。探讨菌群如何通过菌群成熟、短链脂肪酸、胆汁酸、色氨酸、B族维生素、核苷酸、免疫和IGF-1/生长轴参与儿童生长,梳理列出发育迟缓儿童中观察到的菌群成熟延迟、发育轨迹异常。同时讨论母乳/辅食、微量营养素、铁剂、WASH、益生菌、HMO/GOS 等干预方向及其边界。
目录
儿童发育迟缓通常按世界卫生组织发布的《儿童发育标准》(Child Growth Standards)定义:年龄别身高低于同年龄、同性别儿童生长曲线中位数减去2个标准差(-2SD)。这里的关键是“年龄别”和“Z评分”。是把孩子的身长/身高放在同年龄、同性别标准曲线中判断。
发育迟缓与消瘦不同。消瘦更多反映近期体重相对于身长/身高不足,常与急性食物不足、急性疾病或快速体重下降有关。发育迟缓则更偏向长期线性生长受限,常反映生命早期较长时间的营养、感染和环境压力。
研究专家同时提醒不能把发育迟缓简单等同于遗传性矮小。父母身高、出生体重、孕周、青春发育、内分泌疾病和慢性疾病都需要综合考虑。因此,判断儿童发育迟缓需要连续生长曲线,而不是一次测量。
为什么前 1000 天特别重要?
从受孕到2岁左右的前 1000 天,是营养、免疫、肠道菌群和神经发育高度敏感的窗口。这个阶段,孩子从宫内营养转向母乳,再逐渐进入辅食和家庭饮食。每一步变化都在塑造肠道生态。
出生后0–3岁,肠道菌群通常从早期以 Bifidobacterium 等利用母乳低聚糖的细菌为主,逐渐走向更复杂、更成人样的厌氧发酵网络。这个过程受到分娩方式、母乳、辅食、感染、抗生素和家庭环境影响。
编辑
如果孩子在这个窗口长期处于营养不足、反复感染或不良卫生环境中,菌群成熟、肠屏障修复和身体生长信号都可能受到影响。它们不是单一因果关系,而是相互牵连的网络。
为什么发育迟缓值得重视?
发育迟缓不仅意味着身高落后。大量研究将早期线性生长不良与感染风险、认知发展、学习能力、成年健康和社会经济结局联系起来。这种关系并不意味着每一个发育迟缓儿童都会出现相同结局,但提示早期生长轨迹需要认真评估。
编辑
联合国儿童基金会、世界卫生组织和世界银行集团共同开展的儿童营养不良估计项目/报告指出:发育迟缓并非一句“孩子晚长”就能概括。它意味着儿童在关键生长窗口长期偏离正常线性生长轨迹,需综合评估营养、疾病、环境和发育状况。
儿童发育迟缓更像是长期叠加的“生长压力”:胎儿期营养不足、早产或低出生体重,出生后母乳或辅食质量不足,反复腹泻或无症状肠道感染,卫生环境差,家庭食物不安全,医疗可及性不足。这些因素叠加在一起,最终影响线性生长。
风险可能从出生前开始
胎儿生长受限、早产、低出生体重与后续线性生长相关。母亲营养不良、贫血、感染、都会改变胎儿和婴幼儿早期生长基础。
编辑
饮食质量:不只是吃饱
儿童维持正常线性生长,不只需要热量,还需要足够优质蛋白、脂肪、必需脂肪酸、铁、锌、维生素A、维生素D、维生素B12、叶酸、碘等营养素。长期只吃稀粥、汤泡饭、甜饮或零食,即便“看起来吃了很多”,也可能能量密度和营养密度都不足。
WHO 2023 年 6–23 月龄婴幼儿辅食指南强调,辅食应及时添加,并逐渐提高频次、质地、食物多样性和动物源性食物摄入。这些基础建议仍是所有菌群导向干预的前提。
感染:会影响消化吸收
反复腹泻、肠道病原体、寄生虫或无症状感染,会让孩子出现食欲下降、吸收不良和炎症消耗。多国出生队列研究表明,儿童生命前2年的腹泻等疾病负担、肠道病原体感染/暴露以及膳食摄入状况,与线性生长、体重增长等生长指标之间存在复杂的相互关系。
这也是为什么有些孩子“补了营养”但仍然恢复有限。营养进入肠道后,还需要健康的肠屏障、足够消化吸收能力和较低炎症负担才能被身体用于生长。
如果把儿童生长看作一棵树,食物是土壤和水分,激素和骨骼是枝干,肠道则像根系所在的土层。肠道菌群不是“让孩子长高”的开关,但它可能参与营养代谢、屏障维护、免疫训练、感染抵抗和生长信号调节或复杂网络中的调节节点。
儿童肠道菌群不是静态的:需要“按年龄长大”
健康儿童的肠道菌群会随年龄、饮食和环境逐步成熟。在谷禾跨年龄和地理人群研究中发现,人类肠道菌群在生命早期变化最快,随后逐渐向成人样结构过渡。这说明儿童菌群不能简单拿成人标准判断。
• 婴幼儿时期肠道菌群变化很快
婴儿早期,母乳喂养儿童常见 Bifidobacterium 优势。Bifidobacterium longum subsp. infantis 等能够利用母乳低聚糖(HMO),产生乳酸和乙酸,并可能帮助抑制部分肠杆菌科扩张。
进入辅食期后,膳食底物从乳糖和 HMO 扩展到淀粉、植物多糖、蛋白质和脂肪。此时,Bacteroides、Prevotella、Ruminococcus、Faecalibacterium、Blautia、Ruminococcaceae 和 Lachnospiraceae 等复杂厌氧发酵网络逐渐建立。这一过程与食物多样性密切相关。
肠道微生物群发育受喂养方式、出生方式、地理位置和环境暴露等多因素影响。研究显示,母乳喂养与较高水平的 Bifidobacterium密切相关,停止母乳喂养则会加速菌群成熟;阴道分娩婴儿肠道中 Bacteroides 水平也较高。尽管存在这些共性,不同个体的菌群发育轨迹仍受生活方式和环境因素影响而各有差异。
编辑
doi: 10.3233/NHA-170030
如何衡量菌群成熟度?
在 2014 年 Nature 研究中提出微生物群年龄 Z 评分(microbiota-for-age Z score, MAZ),用于评估儿童肠道菌群成熟度是否匹配实际年龄。研究团队基于健康马拉维儿童粪便菌群数据建立“菌群年龄”预测模型,并发现严重急性营养不良(SAM)儿童的菌群成熟度落后于同龄健康儿童,呈现发育不成熟或“低龄化”特征。
注:标准营养治疗可在短期内改善部分菌群特征,但治疗结束后,菌群成熟度可能再次下降,提示菌群成熟延迟可能参与营养不良的持续或复发。
谷禾健康基于 10 多年的肠道菌群检测实践,也构建了人体年龄预测方法及介质(GUHEAge 模型)。该模型通过可靠样本筛选降低噪声诱导关联的影响,并考虑不同生命阶段菌群发育速率的差异。尤其在婴幼儿期,肠道菌群经历快速定植、演替和成熟,短期内组成和功能潜力变化显著,因此模型在年龄尺度和样本分层上采用更精细的时间窗口,以捕捉早期菌群快速成熟的动态特征。
• 发育迟缓儿童的菌群年龄滞后现象
发育迟缓儿童的肠道菌群呈现出明显的“年龄滞后”特征,这种现象反映在菌群的多样性、组成结构和功能等多个方面。研究表明,这些儿童的肠道菌群发育水平往往落后于其实际年龄,这种滞后可能是导致发育迟缓的重要因素之一。
之前发表在《Gut》上的针对自闭症儿童菌群发育的研究显示,自闭症儿童的菌群发育要滞后于健康儿童。
编辑
在菌群组成方面,发育迟缓儿童表现出显著的特征性改变。首先是有益菌群的明显减少,特别是双歧杆菌和乳杆菌的含量显著低于同龄健康儿童。这些菌群对维持肠道健康、促进营养物质吸收和调节免疫功能具有重要作用。同时,研究还发现这些儿童的肠道中普氏菌(Prevotella)和粪杆菌(F.prausnitzii)等核心菌菌含量也明显降低。
编辑
doi.org/10.1136/gutjnl-2021-325115
但是需要注意,不管是MAZ 研究工具还是谷禾肠道擦年龄评估模型,都不能看作是临床诊断项目,不能把粪便菌群检测中的“菌群年龄”直接等同于发育迟缓诊断。
更应该理解为菌群成熟度比“某个菌多一点或少一点”更适合解释儿童营养不良的长期性。
早期菌群发育滞后对身体多系统产生影响
肠道菌群发育滞后会对婴幼儿的多个系统产生深远影响。
•在神经系统方面:可能导致认知发育迟缓、语言发育延迟、注意力不集中,甚至增加自闭症谱系障碍(ASD)的风险;
•在免疫系统方面:常见表现包括反复呼吸道感染、特应性皮炎、食物过敏,以及哮喘等过敏性疾病的发生率升高;
•在代谢系统方面:可能引起生长发育迟缓、体重增长异常、微量元素吸收不良等问题;在消化系统方面,则可能出现腹泻、便秘、肠痉挛等功能性胃肠道疾病。
特别是在出生后最初1000天这个关键期内,肠道菌群的发育状况对婴幼儿的长期健康具有决定性影响。
因此,规范的肠道菌群检测可作为婴幼儿发育评估的重要参考,内容包括微生物多样性指数、关键菌群(如双歧杆菌、乳酸菌、粪杆菌等)丰度及潜在致病菌监测。
建议在以下关键时间点进行检测:出生后1-2个月、辅食添加期(4-6个月)、断奶期(12个月左右)以及2岁左右。对于高危人群,如早产儿、剖宫产婴儿、有过敏家族史或自身免疫性疾病家族史的婴幼儿,需要更频繁的监测。
这种检测不仅能够及早发现发育风险(如自闭症倾向、过敏风险、免疫功能异常等),还能为个性化干预方案的制定提供科学依据。特别是对于已经出现发育迟缓、免疫功能低下、消化吸收障碍等问题的婴幼儿,定期的肠道菌群检测对评估干预效果和及时调整治疗方案具有重要的临床指导意义。
菌群如何影响能量和营养代谢?
肠道菌群可以分解人体自身难以消化的复杂碳水化合物,产生短链脂肪酸( SCFAs),包括乙酸盐、丙酸盐和丁酸盐。丁酸盐可为结肠上皮细胞供能,乙酸盐和丙酸盐可参与能量代谢和肝脏代谢调节。
• 产短链脂肪酸菌群会影响能量代谢
在发育迟缓或营养不良儿童中,Faecalibacterium、Blautia、Bifidobacterium、Roseburia、Megasphaera、部分 Ruminococcaceae 和 Lachnospiraceae 等与 SCFA 生成相关的菌群,在若干研究中呈减少趋势。这可能意味着膳食底物和微生物交叉喂养网络不足。
但是要注意一个误区:看到丁酸盐菌减少,并不等于“补丁酸盐菌就能长高”。SCFA 网络需要多样化食物底物、适龄辅食、低炎症环境和成熟菌群共同支持。单一菌株或单一代谢物补充不能替代基础营养。
B族维生素、核苷酸与氨基酸
多项微生物组研究提示,发育迟缓相关差异不只体现在菌的构成变化,还体现在功能通路。目前已经了解到到B 族维生素生物合成、核苷酸代谢、碳水化合物利用、氨基酸代谢等功能通路,可能与儿童生长指标相关。
B 族维生素参与能量代谢、核酸合成和神经发育。核苷酸与肠上皮更新、免疫细胞增殖和组织修复有关。氨基酸代谢则与蛋白质合成、免疫功能和生长轴支持相关。
但是菌群报告里功能通路来自微生物功能预测,不一定等同于血液或肠腔代谢物实测,更多反馈相关菌群功能潜力和膳食摄入情况。
肠屏障与黏膜免疫:为什么“低度炎症”会消耗生长资源?
肠道屏障是儿童将食物转化为生长材料的关键界面。健康屏障既促进营养吸收,又限制病原体和微生物产物入侵;一旦受损,脂多糖(LPS)等微生物产物可能激活Toll样受体4(TLR4)和 NF-κB 炎症通路。
在分子层面,LPS、鞭毛蛋白等病原相关分子模式可激活先天免疫信号;在细胞层面,巨噬细胞、树突状细胞和 T 细胞可能释放促炎因子;在组织层面,紧密连接、黏液层和绒毛结构可能受损;在系统层面,慢性炎症会增加能量消耗,并可能抑制生长支持信号。
短链脂肪酸(SCFA),尤其是丁酸盐,可能支持上皮细胞供能、紧密连接和调节性 T 细胞功能;色氨酸代谢物如吲哚类化合物,可能通过芳香烃受体(AhR)和 IL-22 相关通路促进黏膜修复。但这些机制在儿童发育迟缓中的直接证据仍有限,更适合作为机制假说,而非临床结论。
不能只看粪便菌群,还要结合小肠、胆汁酸和脂质吸收
粪便样本主要反映结肠生态,而很多营养吸收发生在小肠。发育迟缓相关研究提示,十二指肠可能出现“口腔样菌群”过度代表,如 Streptococcus、Veillonella、Haemophilus、Neisseria、Rothia、Actinomyces 等。这被称为消化道生态位“隔室化解除”。
• 小肠菌群异常可能影响胆汁酸代谢和脂质吸收
胆汁酸不仅帮助脂肪吸收,也通过 FXR 和 TGR5 等受体参与肠屏障、代谢和免疫调节。若小肠菌群、胆汁酸转化和局部炎症同时异常,儿童可能出现“吃了但利用不足”的状态。
不过,十二指肠取样具有侵入性,健康儿童对照难获得,样本量通常有限。因此这类证据很有机制价值,但不能用于家庭检测或普通商业菌群报告解释。
首先要强调的是发育迟缓儿童的菌群差异,不能用“好菌少、坏菌多”简单概括。更符合证据的说法是:若干研究观察到菌群成熟延迟、条件致病菌富集、丁酸盐产生菌减少、特定营养代谢异常和功能通路改变。但是这些的评估需要足够大的检测数据能涵盖不同地区、年龄、饮食和用药等差异。
菌群成熟延迟:发育迟缓儿童的肠道“年龄”可能偏小
如前面所述,严重急性营养不良(SAM)儿童存在菌群成熟延迟,营养治疗后可部分改善但恢复不完全。这一发现后来成为理解儿童营养不良菌群的核心框架。
成熟延迟并非指某种菌不应出现,而是整个菌群网络尚未达到同龄儿童常见的功能状态。例如,断奶后儿童通常需要发展更强的复杂碳水发酵、厌氧交叉喂养、短链脂肪酸生成及维生素/核苷酸代谢能力;若这些功能不足,可能影响辅食营养的充分利用。
基于这一思路,相关研究不再仅关注补充热量,而是通过设计食物底物,促进与健康成熟轨迹相关的菌群和血浆蛋白网络。
Bifidobacterium:早期重要,但不能简单理解为越多越好
双歧杆菌(Bifidobacterium)是婴儿早期备受关注的菌属。母乳喂养婴儿中,Bifidobacterium 可利用 HMO 产生乳酸和乙酸,并可能抑制肠杆菌科扩张。
在营养不良或发育迟缓相关研究中,Bifidobacterium 的解读需按年龄分层。婴儿早期不足,可能提示母乳利用、HMO 代谢或早期定植抵抗不足;但随着辅食添加和断奶,其相对丰度下降也可能属于正常成熟过程。
因此,不能简单认为 “Bifidobacterium 越多越好”。其意义取决于年龄、喂养方式、HMO 暴露、菌株功能及整体菌群成熟阶段。
条件致病菌富集:Escherichia/Shigella、Campylobacter 与炎症生态位
多项研究发现,发育迟缓或营养不良儿童中 Proteobacteria/Pseudomonadota、肠杆菌科、Escherichia/Shigella、Campylobacter等菌群富集。这些细菌常与病原负担、脂多糖、肠道炎症及定植抵抗不足有关。
Escherichia/Shigella 富集可能提示肠道炎症生态位,其脂多糖(LPS)和毒力因子可激活先天免疫,增加肠道炎症和通透性。Campylobacter 感染或定植在中低收入国家儿童中较常见,与腹泻及无症状感染负担相关。
但解读时需谨慎:粪便中某一菌属升高,并不能证明其单独导致发育迟缓。它可能是卫生暴露、饮食不足、抗生素使用、炎症或环境性肠功能障碍(EED)的结果,也可能参与维持炎症。
口腔样菌群和十二指肠隔室化解除
近年研究表明,小肠,尤其是十二指肠生态,可能比粪便样本更接近吸收障碍的发生现场。发育迟缓儿童的十二指肠中,常可见 Streptococcus、Veillonella、Haemophilus、Neisseria、Rothia、Actinomyces 等口腔相关菌过度富集。
这一现象可称为“隔室化解除”,即原本多见于口腔或上消化道的细菌在小肠异常增多,可能与胃酸、胆汁酸、肠蠕动、局部免疫及肠屏障异常有关。
这些口腔样菌群可能影响脂质吸收、胆汁酸信号和小肠局部炎症。若儿童本身饮食质量不足,再叠加小肠吸收效率下降,线性生长可能更易受影响。
注:但目前十二指肠取样不适合普通筛查,粪便商业菌群检测也不能替代小肠生态评估。
丁酸盐产生菌减少:Faecalibacterium、Blautia、Megasphaera等
若干发育迟缓研究观察到丁酸盐或 SCFA 相关菌减少,如 Faecalibacterium、Blautia、Megasphaera,以及 Ruminococcaceae、Lachnospiraceae 的部分成员。这些菌参与复杂碳水降解、乳酸利用、丁酸盐生成和微生物交叉喂养。
Faecalibacterium prausnitzii 常被视为重要丁酸盐产生菌,并与抗炎环境相关;Blautia 参与碳水发酵和 SCFA 生成;Megasphaera 可利用乳酸并参与交叉喂养网络。它们减少可能提示儿童肠道发酵网络发育不足。
丁酸盐产生菌减少可能源于饮食底物不足、感染、炎症、抗生素使用或菌群成熟延迟。改善这一网络应优先从适龄辅食、膳食多样性、感染控制和基础营养入手。
Prevotella、Ruminococcus 相关成熟轨迹
一些与健康成熟轨迹相关的菌群受到关注,如 Prevotella copri、Faecalibacterium prausnitzii、Bifidobacterium longum、Bacteroides thetaiotaomicron 等。不同研究显示,它们与食物底物利用、复杂多糖发酵或菌群成熟网络有关。
Prevotella 常与植物性多糖和高纤维饮食相关,但其健康意义取决于个体肠道环境,不能简单归为“好菌”或“坏菌”。在 MDCF 语境中,研究重点是特定食物组合如何促进与年龄适宜成熟相关的菌群网络,而非单纯提高某一菌属丰度。
Ruminococcus、Clostridium symbiosum 等曾在动物模型或定义菌群研究中被讨论为促生长候选菌,但仍属于转化研究线索,不能据此直接用于儿童补菌。
Desulfovibrio、噬菌体和病毒组:仍处于探索阶段
2024 年系统综述提出了一些探索性线索,包括 Desulfovibrio 等硫酸盐还原菌的潜在变化,以及噬菌体、病毒组与肠道菌群失衡和儿童生长发育异常的可能关联。但这些发现多来自少量研究或关联性观察,仍需更多纵向和机制研究验证。
Desulfovibrio 可产生硫化氢,理论上可能影响黏膜环境,但其在儿童发育迟缓中的因果证据仍不足。
噬菌体与细菌群落的共同变化,可能影响菌群稳定性和功能基因转移。目前这些方向更适合作为未来研究议题,不宜用于临床解释或家庭干预依据。
功能通路异常:从菌名走向“菌群能做什么”
从报告角度,功能通路比菌名清单更重要。发育迟缓相关研究反复提示,碳水化合物降解、B 族维生素、核苷酸、氨基酸、SCFA、胆汁酸和色氨酸代谢可能与儿童生长相关。
其中,B 族维生素和核苷酸通路与细胞增殖、肠道修复和能量代谢有关;SCFA 通路与屏障和免疫调节有关;胆汁酸和脂质吸收通路与小肠生态有关。
这些通路共同解释了为什么“吃进去”与“长出来”之间还隔着肠道功能这一层。
环境性肠功能障碍(Environmental Enteric Dysfunction, EED)是理解儿童发育迟缓的重要概念,常见于低资源、高病原暴露环境,表现为小肠慢性炎症、屏障受损、通透性升高、吸收不良及系统性炎症负担增加。
EED 的价值在于串联多个关键环节:卫生环境差使儿童反复接触病原体;病原暴露和菌群失衡诱发小肠炎症;屏障与绒毛结构受损降低营养吸收效率;慢性炎症进一步可能影响 IGF-1 和生长轴。
1
分子—细胞—组织—系统:EED 的机制层级
•在分子水平:LPS 等病原相关分子模式可能激活 TLR4/NF-κB 炎症通路。
•在细胞水平:巨噬细胞、树突状细胞和 T 细胞参与免疫激活,促炎因子释放增加。
•在组织水平:小肠绒毛结构、隐窝增生、紧密连接和黏膜修复可能受到影响。吸收面积下降时,即便食物进入肠道,也未必能高效转化为身体生长所需营养。
•在系统水平:儿童身体需要把更多能量用于免疫应答和组织修复。营养不足与炎症负担叠加时,线性生长支持可能下降。
2
EED 指标评估
研究中常用乳果糖/甘露醇试验、粪便 MPO、AAT、neopterin、calprotectin、宿主粪便 mRNA 等指标评估 EED 或肠道炎症。但 EED 缺乏统一常规临床金标准,这些指标多用于研究或专科评估。
因此,家庭不能靠商业菌群检测或单个粪便指标判断孩子是否存在 EED。家庭层面更应关注特征信号:持续腹泻、便血、贫血、反复感染、体重下降、身高增长速率下降等。
3
为什么单一干预常常不够?
研究提醒我们,改善水和卫生行为本身很重要,但在复杂低资源环境中,单独卫生未必足以显著改善线性生长。这可能因为病原暴露来源复杂,包括食物、动物粪便、土壤、家庭拥挤和社区环境。
更合理的策略是综合干预:基础营养、感染控制、安全饮水、食品卫生、疫苗接种、社会支持和儿童保健同时推进。
以下内容用于解释不同干预方向的证据边界,不是治疗方案。铁剂、锌剂、维生素A/D、益生菌、抗生素、特殊医学用途配方食品、RUTF/RUSF 或微生物群导向互补食品,都应根据儿童年龄、营养状态、感染风险和医生/营养师评估决定。
干预前先评估:孩子到底慢在哪里?
对于“生长轨迹偏慢”的儿童,第一步不是购买益生菌或微量元素套餐,而是先判断:是否确有低于同年龄、同性别儿童生长曲线中位数减去2个标准差(-2SD),是否合并消瘦、低体重或水肿,是否存在慢性腹泻、贫血、反复感染、早产或低出生体重等情况。
临床检查应根据病史、生长曲线和体征选择,如 CBC、铁蛋白联合 CRP、维生素 D、甲状腺功能、大便病原、寄生虫或慢性腹泻相关评估,而非对所有儿童套用统一套餐。
母乳:早期菌群的第一生态底物
母乳不仅提供能量、蛋白质和免疫因子,也提供母乳低聚糖(HMO)。HMO 不能被婴儿直接完全消化,却能为 Bifidobacterium 等菌提供底物。唾液酸化乳低聚糖可能通过菌群依赖方式支持生长。
6月龄内支持母乳喂养,母乳不足时接受专业哺乳指导,必要时用合适配方补充。
辅食:喂孩子,也是在喂菌群
约 6 月龄后,辅食成为儿童生长和菌群成熟的重要驱动因素。WHO 2023 指南强调,6–23 月龄儿童应逐步获得足够频次、合适质地、多样化食物和动物源性食物。
高质量辅食不仅提供能量和蛋白质,也提供复杂碳水、膳食纤维、铁、锌、维生素和脂肪,共同支持 Bacteroides、Prevotella、Faecalibacterium、Blautia 等成熟菌群网络建立。
家庭层面应重视“营养密度”:主食不应只依赖稀粥,还应搭配蛋、奶、鱼肉、禽肉、瘦肉、豆制品、深色蔬果和适量油脂。
微量营养素:补对,而不是越多越好
铁、锌、维生素A、维生素D、维生素B12、叶酸、碘等均与儿童生长、免疫和神经发育相关。存在缺乏时,规范补充有助于恢复正常生长轨迹;但盲目、长期、大剂量叠加补剂并不一定更好。
锌适用于急性腹泻等明确场景;维生素A缺乏地区或高风险儿童应按公共卫生或临床规范补充。维生素D 关系骨骼发育,B12和叶酸关系造血与神经发育,碘则关系甲状腺功能和生长。
编辑
关键在于“评估后补充”。挑食但无明确缺乏的孩子,与贫血、慢性腹泻且生长曲线下降的孩子,可能需要完全不同的管理路径。
铁剂:最需要谨慎解释的营养干预
铁缺乏性贫血会影响食欲、免疫、认知和生长,规范补铁是必要治疗。但在高感染负担环境中,铁可能被部分肠道病原菌利用,并与肠道炎症风险相关。
因此,不能简单表述为“铁会喂养坏菌,所以不要补铁”。更准确的说法是:缺铁性贫血需要规范补铁;对感染负担较高或慢性腹泻儿童,应由专业人员结合血红蛋白、铁蛋白、CRP、感染风险和膳食情况综合评估。
如需补铁,还应重视饮食配合。含铁辅食、动物源性食物和富含维生素 C 的食物有助于铁摄入;茶和咖啡不宜与儿童正餐同用。
与感染控制:卫生不是万能,但仍是基础
腹泻期间应继续喂养、及时补液,必要时按医嘱补锌。若出现长期反复腹泻、便血、发热、体重下降或慢性腹胀,应就医排查病原、寄生虫、吸收不良或慢性肠病。
卫生方面,安全饮水、洗手、食物充分加热、餐具清洁、妥善处理粪便,并减少儿童接触动物粪便和污染土壤,仍是降低感染暴露的基础。需强调的是,线性生长依赖营养、感染控制和社会环境的综合改善。
抗生素:用得准,而不是完全不用
抗生素可挽救细菌感染儿童,但不应作为“调菌”工具。病毒感冒、非细菌性腹泻或无明确适应证时,不应自行使用抗生素。
生命早期反复或不必要的抗生素暴露可能扰乱菌群成熟,减少双歧杆菌和厌氧共生菌,增加腹泻和耐药风险;但真正的细菌感染仍需及时、规范治疗。
益生菌:有证据的场景,不等于治疗发育迟缓
部分益生菌在急性感染性腹泻等场景中有证据支持,但这属于腹泻管理证据,并不等同于益生菌能改善发育迟缓。其效果高度依赖菌株、剂量、年龄、基础疾病、营养状态和原有菌群。
应尽量具体到菌株,而非笼统称“益生菌”。例如,Bifidobacterium infantis EVC001 常用于讨论早期 HMO 利用和双歧杆菌定植,但不能泛化为所有 Bifidobacterium 产品都能改善生长。
早产儿、SAM、免疫低下、重症或有中心静脉导管的儿童,使用活菌制剂需在医疗监督下进行。报告中不应建议家庭自行长期、高剂量使用益生菌。
益生元、HMO/GOS:儿童证据仍不足
益生元和 HMO/GOS 的核心思路是提供底物,支持特定菌群代谢。例如 GOS 可能支持 Bifidobacterium 和 SCFA 相关通路,并在部分铁补充研究中被讨论为缓解不良菌群变化的策略。
但儿童发育迟缓干预证据不足。HMO 是母乳重要成分,并不意味着补充 HMO 产品即可治疗发育迟缓。GOS 也不能替代均衡辅食和临床营养管理。
MDCF:最有前景的菌群导向营养策略之一
微生物群导向互补食品(Microbiota-Directed Complementary Food, MDCF)是该领域重要前沿。它并非简单增加食物种类,而是基于儿童菌群成熟轨迹,设计可促进健康菌群网络的食物组合。
2021 年 NEJM 研究纳入 123 名孟加拉国 12–18 月龄中度急性营养不良(MAM)儿童,比较 MDCF-2 与常规补充食品 RUSF。结果显示,MDCF-2 在体重相关指标(如 WLZ、WAZ)变化率、部分生长相关血浆蛋白和菌群特征方面更有利。2024 年 eBioMedicine 对同一人群的两年随访进一步提示,MDCF-2 组线性生长相关结局更好。这些研究为“通过食物底物支持菌群成熟,促进营养恢复”提供了重要临床线索。
但需明确,MDCF-2 是特定研究配方,适用于孟加拉国 12–18 月龄 MAM 儿童,并在研究团队监测和食品安全条件下使用,不能简化为“花生、香蕉、大豆随意混合”,也不能作为所有发育迟缓儿童的家庭处方。
因此,发育迟缓干预的第一步不是购买菌群产品,而是专业评估、基础营养、感染控制和卫生改善。益生菌和 HMO/GOS 是重要研究方向,但必须明确适用人群、配方、剂量和安全边界。
对家庭而言,最重要的不是寻找一种“神奇菌”,而是稳定做好生长监测、基础营养、感染预防和及时就医。对临床和公共卫生而言,重点是分层评估和多部门支持。
1
家庭可做什么?
•0–6月龄:优先支持母乳喂养,关注尿量、体重增长、喂养姿势和奶量。不要用米汤、果汁或成人食物替代奶。若体重增长不足、喂养困难或尿量减少,应就医评估。
•6–23 月龄:约 6 月龄及时添加辅食,逐步提高质地和频次。每餐尽量包括主食、蛋/奶/鱼肉/豆类、蔬果和适量油脂。避免长期稀粥、汤水或零食替代正餐。
•2岁以上:维持规律三餐和多样化饮食,减少甜饮和高糖零食。关注身高增长速率,而不是只看单次身高。
2
哪些情况需要就医?
出现以下情况应及时就医:
1.HAZ/LAZ < -2 或生长曲线持续明显下滑;
2.体重下降、消瘦、MUAC 异常或水肿;
3.持续或反复腹泻、便血、长期呕吐或明显腹胀;
4.贫血、反复发热或感染、慢性咳嗽、食欲显著下降;
5.发育倒退、神经发育迟缓或青春发育异常。
早产、低出生体重、免疫缺陷、慢性肠病、肝肾病、内分泌疾病或遗传病史儿童,也应尽早接受专业评估。
3
公共卫生需要做什么?
公共卫生策略应整合食物可及性、母乳和辅食教育、强化食品、免疫接种、感染控制和社会支持等。
儿童发育迟缓并不只是“吃得少”,也不能简单归因于“菌群不好”。它往往是营养质量不足、反复感染、卫生条件差、环境性肠功能障碍(EED)、肠道菌群发育不成熟、肠屏障受损、免疫炎症持续激活和生长轴调控异常等多因素长期共同作用的结果。
肠道菌群研究为理解“为什么吃进去了,孩子却不一定长起来”提供了新视角。前沿研究提示,未来营养干预可能不仅要“喂养孩子”,也要“喂养菌群”:通过支持放线杆菌、拟杆菌、链球菌、双歧杆菌、Prevotella 属及多种年龄相关关键菌群的发育,改善生长和整体健康结局。
不过,这一领域仍有许多问题待解:哪些微生物是真正关键的干预靶点?相关干预通过何种机制发挥作用?能否据此发展出更个体化的营养策略,用于应对营养不良和发育迟缓?这些仍需进一步研究。
从临床到公共卫生,这些发现都具有重要意义。医务人员可据此设计更有针对性的营养支持方案,促进脆弱儿童肠道微生物群健康发育;若将相关干预纳入国家营养项目和社区行动,也有望带来更持久的健康收益,帮助打破营养不良与贫困的恶性循环。
但目前最可靠、最基础的策略,仍是专业评估、合理营养、感染控制、卫生改善,以及持续的家庭和社会支持。
医学免责声明:本文为科普与综述性资料,不构成个体化医疗建议。
主要参考文献:
Subramanian S, Huq S, Yatsunenko T, Haque R, Mahfuz M, Alam MA, Benezra A, DeStefano J, Meier MF, Muegge BD, Barratt MJ, VanArendonk LG, Zhang Q, Province MA, Petri WA Jr, Ahmed T, Gordon JI. Persistent gut microbiota immaturity in malnourished Bangladeshi children. Nature. 2014 Jun 19;510(7505):417-21.
WHO Multicentre Growth Reference Study Group. WHO Child Growth Standards based on length/height, weight and age. Acta Paediatr Suppl. 2006 Apr;450:76-85.
WHO Guideline for complementary feeding of infants and young children 6–23 months of age [Internet]. Geneva: World Health Organization; 2023.
Guideline: Updates on the Management of Severe Acute Malnutrition in Infants and Children. Geneva: World Health Organization; 2013.
WHO guideline on the prevention and management of wasting and nutritional oedema (acute malnutrition) in infants and children under 5 years. Geneva: World Health Organization; 2023.
Bhutta ZA, Das JK, Rizvi A, Gaffey MF, Walker N, Horton S, Webb P, Lartey A, Black RE; Lancet Nutrition Interventions Review Group, the Maternal and Child Nutrition Study Group. Evidence-based interventions for improvement of maternal and child nutrition: what can be done and at what cost? Lancet. 2013 Aug 3;382(9890):452-477.
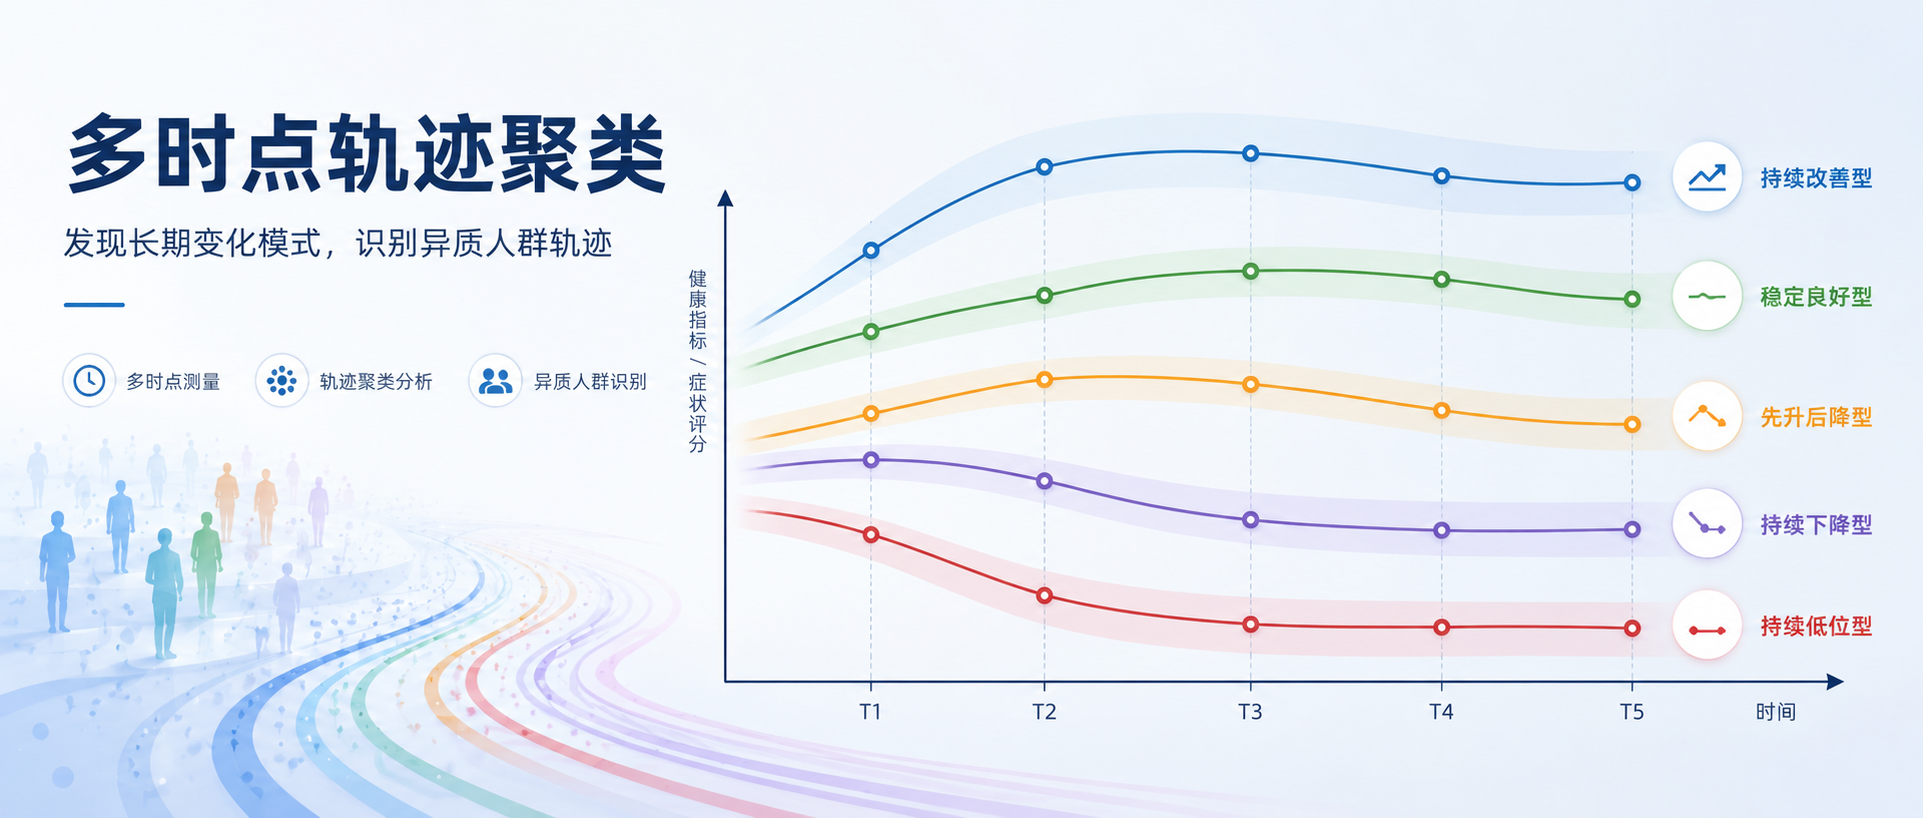
谷禾健康
科研绘图不仅要展示真实严谨的数据,更要讲究排版的美观与可读性。
今天小编来分享一个兼具美感和实用性的R包——vbracket,它打破常规,将组间差异的统计学显著性括号直接集成到了图例的垂直结构中,助你的文章插图提升到顶刊发表级的水准。
vbracket?vbracket 是专门为 ggplot2 开发的一个高度定制化的图例增强包。
它的核心设计理念是:既然图例已经垂直排列了各个分组的名称和颜色,为什么不直接在图例的分组之间拉起垂直括号,来展示它们的两两差异呢?
vbracket 做法编辑
(注:图例右侧的垂直括号展示了 WT/Dox vs CH3+5 等组间的显著性差异)
vbracket 高阶美化编辑
vbracket 官方示例效果展示
编辑
vbracket 官方示例效果展示
下面我们以代谢物数据差异分析为例,展示如何快速上手 vbracket。
目前该包托管在 GitHub,可以通过 devtools 快速安装:
# 如果未安装 devtools,请先执行 install.packages("devtools")devtools::install_github("h20gg702/vbracket")
研究问题:益生菌干预前后,短链脂肪酸(SCFAs)的变化是否不同于安慰剂组?
这里的重点不是简单比较 0d 或 56d 某一个时间点两组有没有差异,而是两组从干预前到干预后的“变化幅度”是否显著不同:
每个受试者先计算:Δ = 56d 相对丰度 - 0d 相对丰度然后比较:Probiotic 组 Δ vs Placebo 组 Δ
suppressPackageStartupMessages({ library(ggplot2) library(vbracket)})metab_file <- file.path(base_dir,"scfa_metabolomics_filtered_by_subject_id_freq_gt1_samples.csv")meta_file <- file.path(base_dir,"filtered_metainfo_subject_id_freq_gt1_rows.csv")metab <- read.csv(metab_file, check.names =FALSE, stringsAsFactors =FALSE)meta <- read.csv(meta_file, check.names =FALSE, stringsAsFactors =FALSE)meta$ghname <- trimws(as.character(meta$ghname))meta$subject_id <- trimws(as.character(meta$subject_id))meta$time_point <- trimws(as.character(meta$time_point))meta$day <- ifelse(meta$time_point =="0d",0, ifelse(meta$time_point =="56d",56,NA_real_))meta$Group <- ifelse(meta$`研究分组` =="安慰剂干预","Placebo", ifelse(meta$`研究分组` =="益生菌干预","Probiotic", as.character(meta$`研究分组`)))meta$Group <- factor(meta$Group, levels = c("Placebo","Probiotic"))sample_cols <- setdiff(colnames(metab),"Metabolite")sample_cols <- sample_cols[sample_cols %in% meta$ghname]long_list <- lapply(seq_len(nrow(metab)),function(i){ data.frame( Metabolite = metab$Metabolite[i], ghname = sample_cols, intensity = as.numeric(metab[i, sample_cols]), stringsAsFactors =FALSE, check.names =FALSE)})long <- do.call(rbind, long_list)plot_df <- merge( long, meta[, c("ghname","subject_id","研究分组","Group","time_point","day")], by ="ghname", all.x =TRUE)
到这里,我们就得到了适合 ggplot2 绘图和统计分析的长格式数据。
一部分人的做法是直接在 0d 和 56d 分别比较两组,这样回答的是:
某个时间点,两组是否不同?
但如果你的问题是“干预前后变化是否不同”,更合适的做法是先在每个受试者内部计算变化量:
Δ56d-0d = intensity_56d - intensity_0d
脚本中使用 reshape() 将同一个 subject_id 的 0d 和 56d 拉成一行,然后计算 Δ:
wide <- reshape( sub[, c("Metabolite","subject_id","Group","day","intensity")], idvar = c("Metabolite","subject_id","Group"), timevar ="day", direction ="wide")wide$delta_56d_minus_0d <- wide$intensity.56- wide$intensity.0wide <- wide[!is.na(wide$delta_56d_minus_0d),]
随后,对每个代谢物分别比较两组的变化量:
delta_placebo <- wide$delta_56d_minus_0d[wide$Group =="Placebo"]delta_probiotic <- wide$delta_56d_minus_0d[wide$Group =="Probiotic"]pval <- t.test(delta_placebo, delta_probiotic)$p.value
也就是说,这里的统计检验是:
Placebo 组的 Δ56d-0d vs Probiotic 组的 Δ56d-0d
将 p 值转换成常见的显著性标记:
p_to_star <-function(p){if(is.na(p)) return("NA")if(p <0.001) return("***")if(p <0.01) return("**")if(p <0.05) return("*")"ns"}
最终,每个短链脂肪酸都会得到一个变化量比较结果,例如:
Δ56d-0d: nsΔ56d-0d: *
这个标签不是某个时间点的横向差异,而是干预前后变化幅度的组间差异。
vbracket展示显著性结果绘图部分保持经典的论文风格:
首先定义颜色:
colors <- c("Placebo"="#00AA00","Probiotic"="#FF4400")groups <- c("Placebo","Probiotic")
然后把变化量检验得到的显著性结果写进 vbracket 的比较结构中:
vb_label <- paste0("Δ56d-0d: ", stat_m$significance)comparisons <- add_bracket_comparisons( groups1 ="Placebo", groups2 ="Probiotic", labels = vb_label)
最后绘图:
p <- ggplot(sum_m, aes(x = day, y = mean, color = Group, group = Group))+ geom_line(linewidth =1.2)+ geom_point(size =3)+ geom_errorbar(aes(ymin = mean - sem, ymax = mean + sem), width =4, linewidth =0.8)+ scale_color_manual(values = colors)+ scale_x_continuous( breaks = c(0,56), limits = c(-3,59), labels = c("0d","56d"))+ labs( title = met, x ="Time point", y ="Relative Abundance")+ theme_classic(base_size =14)+ theme( plot.title = element_text(hjust =0.5, size =16, face ="bold"), legend.position ="none")+ legend_bracket( labels = groups, colors = colors, comparisons = comparisons, position ="topleft", output_width =6, output_height =4, width =0.36, text_size =9, sig_size =8)ggsave(file_png, p, width =6, height =4, dpi =300)
编辑
从图中可以直观看出,尽管起点不同,但益生菌干预显著促进了丙酸的产生
为了让大家在排版时少走弯路,在使用 vbracket 时有以下两点需要特别注意:
由于图例中文字宽度、括号间距的计算是基于物理绝对单位(如毫米或英寸)进行的,因此在 legend_bracket() 中设置的 output_width 和 output_height,必须与你最终用 ggsave() 保存时的宽高完全一致!否则,导出的 PDF 或 PNG 中括号和文字可能会发生错位。
在编写 legend_bracket(labels = ...) 时,填写的组名顺序要与你在 add_bracket_comparisons() 里使用的组名完全一致,且顺序应符合逻辑(通常是从上到下对应的实验组顺序)。
vbracket 包非常适合处理多时间点折线图+显著性标记。如果你也有类似的场景,一起用起来吧!
谷禾健康
编辑
在人类肠道这个高度复杂的“微型生态系统”中,除了广为人知的细菌之外,还栖息着一类常被忽视却至关重要的微生物——古菌。
其中,Methanobrevibacter smithii(史氏甲烷短杆菌)作为人体肠道中最主要的产甲烷古菌,具有短杆/卵圆形、肽聚糖样细胞壁、丰富黏附蛋白等特征。它能通过消耗发酵细菌如Prevotella产生的氢气并生成甲烷,不仅维持了肠道微生态的代谢平衡,还在能量回收、菌群互作以及宿主健康中发挥着关键作用。
近年来,随着宏基因组学和代谢研究的推进,M.smithii 已从“沉默的共生者”转变为研究热点。该菌自生命早期定植并伴随终生,通过与细菌及宿主的多重互作调控能量代谢与疾病风险。在不同疾病中,其可能表现为“保护性减少”或“风险性增加”。目前,其在便秘型肠易激综合征、肥胖、炎症性疾病及结直肠癌中的潜在作用正逐步被揭示。
Methanobrevibacter smithii(史氏甲烷短杆菌)是人类肠道中最主要的产甲烷古菌,也是目前研究最深入的人体“古菌共生者”之一,其在能量代谢、肠道微生态和多种疾病中扮演重要角色。多项研究从形态学、基因组学、代谢特征和生态位等方面刻画了其“基本特性”。
1
分类学
史氏甲烷短杆菌(M. smithii)属于广古菌门、甲烷杆菌科 (Methanobacteriaceae),是人类肠道最优势的古菌代表,约占肠道古菌的 >90%。
2
细胞形态与结构
▸ 形态
编辑
▸ 细胞壁结构(关键差异)
▸ 特殊结构
提示:这些特征使其在免疫识别、抗性、进化上都不同于细菌。
3
生长环境
▸ 基本生理条件
为典型中温、专性厌氧、氢营养型产甲烷菌。
4
代谢能力
▸ 核心特征
其核心代谢途径是:
CO2+4H2→CH4+2H2O
•即利用H₂(由发酵细菌如 Bacteroides, Clostridium产生)还原 CO₂ 生成甲烷。
• 不能利用糖类、蛋白质等常见有机碳源,完全依赖 氢营养型代谢。
M. smithii产甲烷途径
编辑
doi: 10.1016/j.heliyon.2024.e36742.
也可利用:
▸ 清除氢气
这点极其关键,因为:
▸ 对短链脂肪酸的间接调控
通过“氢转移”
5
耐药性
▸ 对大部分抗生素耐药
古菌对多数抗细菌抗生素不敏感,如β-内酰胺类(如青霉素、头孢菌素,因缺乏细菌细胞壁合成靶点)、大环内酯类、氨基糖苷类、喹诺酮类。
▸ 有效药物
莫匹罗星(特异性抑制古菌异亮氨酰-tRNA合成酶)、部分硝基咪唑类(如甲硝唑,部分敏感,但易产生耐药)。利福昔明 + 新霉素(IMO常用)、甲烷抑制剂(研究中)。
!
提示
常规肠道菌群检测(细菌培养)可能会漏检,需特异性古菌PCR或宏基因组测序。
Methanobrevibacter smithii(史氏甲烷短杆菌)是人体内分布最广泛且最具代表性的产甲烷古菌,主要定植于胃肠道,尤其在结肠中丰度最高。
除肠道外,M. smithii 亦可在口腔、呼吸道及个别体液或组织样本中被检测到,提示其具有一定的跨部位分布潜力。
M.smithii在人类中的定植
编辑
doi: 10.1016/j.heliyon.2024.e36742.
▸ 胃肠道
目前关于M. smithii在肠道中的认识主要来源于粪便研究。
▸ 胃和小肠的环境不太利于M. smithii定植
实际上,胃、小肠和大肠在pH、氧分压、菌群组成及黏液厚度等方面存在显著差异,从而影响其定植。胃内强酸性环境(pH 2–3.5)、较高氧分压、低菌密度及薄黏液层均不利于M. smithii生长。
小肠中,随着从十二指肠到回肠pH升高(6至7.5)及氧分压下降,兼性厌氧菌(如肠杆菌科和链球菌科)逐渐占优势,而并非M. smithii的理想生态位。
▸ 结肠和直肠更适合M.smithii 定植
相比之下,结肠和直肠具备近中性pH(6.5–7)、强厌氧环境及较厚黏液层,更适合M. smithii定植,并支持其与拟杆菌科和瘤胃球菌科形成稳定的代谢网络。
▸ 口腔
M. smithii已在牙周病相关口腔样本中被分离鉴定。在对54份口腔样本进行气相色谱分析后,有20份检测到甲烷,其中3份通过间接免疫荧光和电子显微镜确认存在M. smithii。
▸ 吸烟者口腔中更容易存在M.smithii
对200份口腔样本(包括52名吸烟者和148名非吸烟者)的研究显示,32%样本检测到M. smithii 16S rRNA基因,其中吸烟者占73%。进一步通过针对mcrA基因的FISH检测,在阳性样本中有39.58%被确认,其中部分为M.smithii与M.oralis的共感染。对PCR阳性样本的培养共获得46例生长,其中包括一例同时分离出M. smithii的吸烟者口腔样本。
总体而言,这些结果表明吸烟与口腔中M. smithii的存在显著相关,提示其可能影响口腔甲烷古菌群落结构。
▸ 下呼吸道
M. smithii亦可在下呼吸道样本中检测到,包括痰液、支气管肺泡灌洗液和支气管抽吸液。通过PCR和RT-PCR扩增古菌及M. smithii的16S rRNA基因,在部分痰液和支气管肺泡灌洗样本中确认其存在。
进一步采用FISH结合共聚焦显微镜进行形态学分析,仅在一份支气管肺泡灌洗样本中观察到M.smithii,而痰液样本未检出阳性信号。
▸ 母乳
通过改进的DNA检测方法及抗氧化培养技术,研究在3份初乳和5份乳汁样本中成功分离出M. smithii。该菌分别通过培养和qPCR在38%(5/13)和29%(37/127)的母乳样本中被检测到,其存在与母体体重指数等代谢特征相关。
既往研究亦表明,母乳中含有多种源自母体肠道的微生物,且母亲与母乳喂养婴儿的肠道菌群具有显著重叠,提示包括M. smithii在内的肠道微生物可能经母乳传播。
总体而言,这些证据表明母乳喂养有助于关键共生菌的垂直传播,并在出生早期促进婴儿肠道微生物群的建立。
▸ M. smithii分布的时间和人群差异
根据文献数据显示,M.smithii在出生后1–2天即可在新生儿胃液和粪便中发现,可能通过母乳或母体来源实现早期定植;并且其在不同年龄、饮食结构及健康状态下,丰度呈动态变化。
▸ 不同地理环境和饮食会影响M. smithii丰度
中国 5 地区 792 名成人研究发现,地理位置是决定肠道古菌组成的主因,其次为城市化、饮食和民族;农村人群粪便中M. smithii 更丰富,饮用酥油奶茶与 M. smithii 升高相关。
而城市化会降低古菌多样性及古菌/细菌比值,M.smithii 减少伴随血清胆碱酯酶水平升高,与现代非传染性疾病上升趋势相呼应。
需要说明的是,M. smithii在有氧环境中的活动,如口腔、血液和母乳,取决于它找到无氧生态位或有利于其生存和潜在代谢活动的条件。例如,在口腔内,牙菌斑可以创造微环境,使M.smithii得以生存。在血液中,其存在通常表明异常状况,虽然可以检测到,但可能并非积极参与正常生理过程,而是参与病理状态。母乳中M.smithii的存在可能是短暂的,也可能是母体微生物群转移的一部分。
▸ 极高龄老人中M.smithii也比较丰富
编辑
影响因子:2.989
在19–109岁人群中,极高龄老人的高甲烷表型与 M. smithii 丰度增加相关,百岁老人的甲烷菌组成更接近年轻人,尤其表现为Methanobrevibacter smithii的回升。研究还揭示两种关键古菌(M.smithii与Ca.M.intestini)在不同年龄阶段的网络作用发生转变,并与产丁酸菌形成复杂共生关系,可能通过代偿机制维持肠道代谢与健康,从而与健康老龄化及长寿相关。
不同人群M.smithii的差异
编辑
▸ 与其它微生物的互作
M. smithii被揭示与细菌、真菌和病毒以及宿主均存在互作关系,构成了一个广泛的网络。
M. smithii及其微生物互作网络的图示
编辑
doi: 10.1016/j.heliyon.2024.e36742.
▸ 产氢气细菌能促进M. smithii的丰度
M. smithii与肠道细菌之间存在复杂的代谢互作。Bacteroides、Prevotella、Ruminococcus和Faecalibacterium等菌通过发酵产生氢气,为M.smithii进行产甲烷提供关键底物。
编辑
Villa R,et al.Trends in Microbiology.2025
在体外研究中,B. thetaiotaomicron产生的氢气和发酵产物可支持M. smithii生长。矛盾的是,这些发酵副产物的积累会扰乱B. thetaiotaomicron的代谢分泌模式,阻碍M. smithii的生长。
相比之下,Christensenella minuta产生氢气的能力更强,对M. smithii的代谢支持更为显著。进一步的体外培养实验表明,M. smithii可抑制硫酸盐还原菌(如脱硫弧菌科)的生长;当其活性被抑制时,这类菌群则显著增加,提示二者在氢气利用上存在竞争关系。
▸ M. smithii可增强部分真菌代谢酶活性
目前尚无关于M. smithii与人类真菌相互作用的研究,但其与瘤胃真菌的关系已有较多报道。M.smithii与Neocallimastix frontalis和Piromonas communis共培养时,可降低真菌对离子载体抗生素(如monensin和lasalocid)的敏感性,但在香豆素或对香豆酸存在时未表现出保护作用。
此外,与N. frontalis、P. communis和Sphaeromonas communis共培养可增强真菌代谢酶活性,促进木聚糖和纤维素发酵,增加乙酸、木糖和己糖的释放;与N. frontalis、Piromyces和Caecomyces共培养则可改善黑麦草及木质化细胞壁的降解。
相反,稻草发酵提取物中的土曲霉可抑制M. smithii生长及其甲烷生成,其机制可能与真菌分泌的洛伐他汀抑制参与甲烷生成细胞膜合成的关键酶(HMG-CoA还原酶)有关。
▸ M.smithii可能会被噬菌体感染
人类病毒组由多种栖息于人体内的病毒组成,参与调控健康、疾病及微生物间相互作用。在消化道中,病毒以尾部双链DNA噬菌体(Caudoviricetes)为主。最新生物信息学研究在多个人源M. smithii基因组中发现了嵌入的Caudoviricetes相关序列,提示该古菌可能受到此类噬菌体感染。
▸ 与人体的相互作用
▸ 影响肠道动力
甲烷在肠道中可能通过多种机制减缓肠蠕动,其作用途径尚未完全明确。现有研究推测,这一过程可能涉及对肠道平滑肌活动的直接影响,同时通过调节肠神经系统的信号传导改变蠕动节律,此外还可能通过气体信号分子的调控发挥作用。这可能导致便秘的发生。
▸ 影响能量代谢
甲烷相关微生物可通过多种途径影响宿主代谢,包括提高能量的获取与利用效率,同时改变短链脂肪酸(SCFA)的组成谱,并进一步调节脂质代谢过程。
▸ M.smithii会影响免疫反应
在人类中,对暴露于M. stadtmanae、M. smithii和M. luminyens的外周血单核细胞(PBMC)及单核细胞来源树突细胞的研究显示,这些古菌可诱导TNF-α和IL-1β等促炎细胞因子释放,并干扰moDC中抗菌肽基因的表达。然而,在Caco-2/BBe肠上皮细胞中未观察到类似反应,提示其识别主要发生于免疫细胞。
此外,小鼠吸入M. smithii可使骨髓来源树突细胞积累增加约10倍。由M. smithii脂质构建的“古菌体”在增强免疫应答方面优于传统脂质体。
Methanobrevibacter smithii是人类肠道中最常见的产甲烷古菌之一,在维持肠道微生态稳态与宿主代谢中发挥重要作用。然而,M. smithii的过度增殖或功能失衡也与多种疾病相关。
1
便秘为主的肠易激综合征中增加 ↑↑↑
▸ 最明确
编辑
影响因子:3.141
▸ M.smithii可能通过抑制肠道蠕动导致便秘
研究显示,肠易激综合征(IBS)患者的M. smithii数量显著高于健康对照,且在便秘型(IBS-C)中最为显著;其丰度与排便频率呈负相关,提示其可能通过抑制肠道蠕动促进便秘。
▸ M.smithii产生的甲烷还可能导致腹胀
此外,M. smithii负荷与呼气甲烷水平及腹胀症状密切相关,支持其在IBS发病机制中的重要作用。
2
肥胖患者中丰度变化
▸ 存在争议
编辑
影响因子:3.514
有研究发现,Methanobrevibacter smithii(史氏甲烷短杆菌) 在肥胖个体中呈现出丰度显著增加的趋势,并通过独特的“代谢协同”机制促进宿主能量吸收和体重增加。
其具体机制包括:
▸ 氢清除效应与能量增效
肠道发酵会产生大量氢气(H₂),积累的 H₂ 会抑制细菌的进一步发酵。而M.smithii利用H₂还原CO₂生成甲烷(CH₄),清除了肠道内的H₂。
H₂降低后,发酵细菌的代谢活性被“解锁”,能更高效地将复杂多糖分解为短链脂肪酸(SCFAs)。使得宿主可吸收的 SCFAs(能量来源)总量增加,导致“能量收获”过度。
▸ 部分新研究发现肥胖者中M.smithii减少
但也有一些新研究发现M.smithii在肥胖患者中丰度呈现下降趋势(基于meta分析结果的综合观察),并且与“瘦相关菌群”表现出共现关系,
因此,现在普遍共识认为M.smithii与肥胖之间的关系具有明显的情境依赖性特征。
3
在高注意力人群中更为丰富 ↑↑↑
编辑
影响因子:7.74
▸ M.smithii丰度较高与更好的注意力及认知相关
一项研究探讨了肠道古菌(尤其是产甲烷菌Methanobrevibacter smithii)与认知功能之间的关系,发现其丰度越高与更好的注意力、执行功能和认知灵活性显著相关,并在两个独立人群队列(n=125;n=942)中得到验证。
高丰度M. smithii个体具有独特的肠道菌群结构及代谢特征,表现为丁酸盐、组氨酸、苯丙氨酸和胆汁酸代谢增强,同时伴随更低炎症及改善的代谢状态。
粪菌移植实验进一步证明,这种微生物生态可改善小鼠认知灵活性和体重,提示古菌通过“肠-肌-脑轴”调控代谢与认知,具有潜在治疗价值。
4
炎症性肠病患者中减少 ↓↓↓
编辑
影响因子:2.914
▸ M.smithii对炎症性肠病具有一定的诊断价值
研究了肠道古菌Methanobrevibacter smithii在炎症性肠病(IBD)中的变化及其作为生物标志物的潜力。
研究发现,IBD患者粪便中M. smithii的丰度显著低于健康人群,提示其与疾病发生密切相关;此外,在疾病缓解期该菌数量高于活动期,说明其可能参与疾病状态调节;ROC分析进一步表明,M. smithii具有一定的诊断价值,可能作为区分健康肠道与IBD的重要微生物标志物。
5
结直肠癌患者中增加 ↑↑↑
编辑
影响因子:12.121
▸ M.smithii可与具核梭杆菌形成互利代谢关系
一项研究通过整合19项临床宏基因组数据(共1882例样本)系统分析人类肠道古菌与疾病的关系,发现古菌与多种疾病存在关联,其中结直肠癌(CRC)患者中Methanobrevibacter smithii显著富集。
进一步通过代谢建模与体外共培养实验揭示,M.smithii可与CRC相关细菌(如具核梭杆菌)形成互利代谢关系,增强细菌生长并改变代谢产物;代谢组学分析表明古菌参与产生具有肿瘤调控作用的代谢物,首次从机制上证明肠道古菌通过“营养级控制”调节细菌群落并影响肿瘤微环境。
6
严重急性营养不良患者中耗竭 ↓↓↓
M. smithii被认为是在因饮食中断和营养不足导致严重急性营养不良(SAM)的非洲儿童肠道中缺失的关键微生物。对SAM儿童粪便的PCR检测显示,该菌显著且不可逆耗竭,仅在4.2%的病例中检出,而对照组为40.9%。
▸ M.smithii影响能量获取可能是导致营养不良的原因
其在营养不良中的作用可能与肠道微生物群的能量获取能力相关。相反,研究也发现其在肥胖人群中更为丰富,提示其可能促进能量提取并加重过度营养相关疾病。因此,其在营养不良中的影响还需结合与其他肠道微生物的相互作用及对营养吸收的调节来理解。
7
M.smithii与肠外感染
M.smithii还可能在一定情况下引发肠道以外部位的感染。
▸ 心内膜炎
在发热患者,尤其是感染性心内膜炎患者的血液中已检测并分离出M. smithii。在5594份厌氧血培养中,有27例(0.5%)细菌阳性且M. smithii PCR阳性。
进一步分析3例相关样本发现:在一次血培养中,通过自体荧光和电子显微镜检测到与金黄色葡萄球菌共存的M. smithii;同时,从两例患者血液中分离并测序获得与S. mutans和S. epidermidis相关的菌株。
▸ 尿路感染
在383份尿标本中,有9%检测到M. smithii。此外,感染尿液样本中53%、18%和3%的M. smithii分别与大肠杆菌、肺炎克雷伯菌和肠杆菌属相关。
▸ 细菌性阴道炎
在细菌性阴道炎(BV)患者的厌氧阴道液中检测到产甲烷活性。通过富集、氯化物色谱及间接免疫荧光分析,鉴定出两个接近M. smithii PS和ALI株的分离株。进一步研究显示,在33例阴道样本中有32例经16S rRNA RT-PCR检测为M. smithii阳性,并在厌氧SAB培养基中分离出9株,同时FISH在2例样本中证实其存在。
▸ 鼻窦炎
在116份来自难治性鼻窦炎患者的手术标本中检测产甲烷菌,PCR共检出12个阳性样本,涉及9名患者(10.3%)。进一步通过FISH和扩增子测序分析发现,其中4名患者存在M. smithii。
▸ 肌肉脓肿
M.smithii从一名41岁患者的椎旁肌肉脓肿中分离获得。测序证实其古菌16S rRNA和mcrA基因,并在SAB培养基联合抗生素培养下表现出对阿莫西林-克拉维酸的体外耐药性及对甲硝唑的敏感性。
▸ 脑脓肿
有一项研究在脑脓肿样本中检测到M. smithii,在18例标本中仅1例经RT-PCR呈阳性。
▸ 牙脓肿
在牙龈下牙菌斑样本中检测并培养出M.smithii。另在37°C厌氧条件下培养4个月,从一例样本中成功分离出M. smithii。
Methanobrevibacter smithii作为人体肠道中最主要的产甲烷古菌之一,在肠道微生态系统中扮演着不可替代的关键角色。它以严格厌氧和氢营养型代谢为主要特征,通过利用氢气并产生甲烷,维持微生物代谢的平衡,从而促进膳食底物的进一步分解与短链脂肪酸的生成,最终影响宿主的能量获取效率。因此,M. smithii 并非传统意义上的“产能微生物”,而更应被视为调控肠道代谢网络运行的重要“生态调节者”。
在健康与疾病状态中,M. smithii的作用主要体现在其对微生物功能与代谢通路的调控,而非单纯的丰度变化。例如,在帕金森病中,其丰度并无显著改变,但却深度参与以谷氨酸为核心的代谢网络重编程;在多发性硬化中,其丰度对治疗具有响应性,可能反映肠道微生态的恢复状态。
此外,通过与其他微生物的共营养作用,M. smithii 还可间接影响致病菌的生长及多种疾病过程,并在肥胖、炎症性肠病及其他慢性疾病中表现出一定的相关性。这些证据共同表明,其对人体健康的影响具有“间接性、系统性和功能导向性”的特点。
M. smithii有望成为连接肠道微生态与宿主代谢、免疫及神经功能的重要桥梁。在未来研究中,其功能状态(如代谢活性和通路参与)可能适合作为疾病生物标志物。同时,围绕其氢代谢和共营养机制的调控,有望发展出新的微生态干预策略,用于代谢性疾病、神经系统疾病以及个体化营养管理。此外,其在肠-脑轴中的潜在作用也为探索微生物参与神经退行性疾病提供了新的方向。
主要参考文献
Malat I, Drancourt M, Grine G. Methanobrevibacter smithii cell variants in human physiology and pathology: A review. Heliyon. 2024 Sep 6;10(18):e36742.
Villa R, Martin-Gallausiaux C, Gribaldo S …
Methanobrevibacter smithii Trends in Microbiology, 2025; 34, 217-218
Malat I, Bossi V, Drancourt M, Grine G, Ruimy R. Methanobrevibacter smithii strain U29 whole genome sequence delineates M. smithii intermediate cell variants. BMC Res Notes. 2025 Oct 1;18(1):414.
Kholwadwala AS, Quigley EMM. Small Intestinal Bacterial Overgrowth and Intestinal Methanogen Overgrowth: Are They Overdiagnosed? Acta Gastroenterol Latinoam. 2025 Dec 23;55(4):276-291.
Fumagalli A, Castells-Nobau A, Trivedi D, Garre-Olmo J, Puig J, Ramos R, Ramió-Torrentà L, Pérez-Brocal V, Moya A, Swann J, Martin-Garcia E, Maldonado R, Fernández-Real JM, Mayneris-Perxachs J. Archaea methanogens are associated with cognitive performance through the shaping of gut microbiota, butyrate and histidine metabolism. Gut Microbes. 2025 Dec;17(1):2455506.
Hu X, Yu C, He Y, Zhu S, Wang S, Xu Z, You S, Jiao Y, Liu SL, Bao H. Integrative metagenomic analysis reveals distinct gut microbial signatures related to obesity. BMC Microbiol. 2024 Apr 5;24(1):119.
Zhou Y, Tao E. The role of intestinal gases in pediatric functional constipation: a narrative review of pathophysiology and emerging therapeutics. Front Nutr. 2026 Jan 2;12:1694831.
Ghoshal U, Shukla R, Srivastava D, Ghoshal UC. Irritable Bowel Syndrome, Particularly the Constipation-Predominant Form, Involves an Increase in Methanobrevibacter smithii, Which Is Associated with Higher Methane Production. Gut Liver. 2016 Nov 15;10(6):932-938.
Catlett JL, Carr S, Cashman M, Smith MD, Walter M, Sakkaff Z, Kelley C, Pierobon M, Cohen MB, Buan NR. Metabolic Synergy between Human Symbionts Bacteroides and Methanobrevibacter. Microbiol Spectr. 2022 Jun 29;10(3):e0106722.
Dirks B, Davis TL, Carnero EA, Corbin KD, Smith SR, Rittmann BE, Krajmalnik-Brown R. Methanogenesis associated with altered microbial production of short-chain fatty acids and human-host metabolizable energy. ISME J. 2025 Jan 2;19(1):wraf103.
Conway de Macario E, Macario AJ. Methanogenic archaea in health and disease: a novel paradigm of microbial pathogenesis. Int J Med Microbiol. 2009 Feb;299(2):99-108.
Mohammadzadeh R, Mahnert A, Shinde T, Kumpitsch C, Weinberger V, Schmidt H, Moissl-Eichinger C. Age-related dynamics of predominant methanogenic archaea in the human gut microbiome. BMC Microbiol. 2025 Apr 4;25(1):193.
Mohammadzadeh R, Mahnert A, Zurabishvili T, Wink L, Kumpitsch C, Habisch H, Sprengel J, Filek K, Mertelj P, Pernitsch D, Hingerl K, Durdevic M, Gorkiewicz G, Diener C, Loy A, Kolb D, Trautwein C, Madl T, Moissl-Eichinger C. Cross-domain metabolic interactions link Methanobrevibacter smithii to colorectal cancer microbial ecosystems. Nat Commun. 2026 Feb 20;17(1):2979.
Baquero DP, Borrel G, Gazi A, Martin-Gallausiaux C, Cvirkaite-Krupovic V, Commere PH, Pende N, Tachon S, Sartori-Rupp A, Douché T, Matondo M, Gribaldo S, Krupovic M. Biogenesis of DNA-carrying extracellular vesicles by the dominant human gut methanogenic archaeon. Nat Commun. 2025 Jun 3;16(1):5093.
Samuel BS, Hansen EE, Manchester JK, Coutinho PM, Henrissat B, Fulton R, Latreille P, Kim K, Wilson RK, Gordon JI. Genomic and metabolic adaptations of Methanobrevibacter smithii to the human gut. Proc Natl Acad Sci U S A. 2007 Jun 19;104(25):10643-8.
谷禾健康
你是否想过,一颗普通的红洋葱、一个清脆的苹果,或者一杯温热的绿茶中,究竟藏着怎样的健康密码?答案指向一种被科学家反复研究的天然活性成分——槲皮素。
作为黄酮类化合物家族中分布最广、含量最丰富的成员之一,槲皮素是植物用来抵御紫外线、病菌和氧化损伤的”保护伞”,而当人类将其摄入体内后,它同样展现出令人惊讶的生物学活性。
大量研究表明,槲皮素的核心能力在于抗氧化与抗炎,并由此延伸出多方面的健康益处:它能中和自由基、激活细胞自身的抗氧化系统,守护心血管的通畅与弹性;它能穿越血脑屏障,为神经元撑起保护伞,延缓大脑衰老;它还能调节免疫反应、缓解过敏与哮喘;并在抗肿瘤和改善代谢紊乱方面展现出令人期待的潜力。可以说,槲皮素是一位”多面手”,在心血管、神经、免疫、代谢等多个系统中发挥着保护作用。
然而,槲皮素并非”吃多少就能用多少”。它的口服生物利用度极低,水溶性差、首过代谢广泛,真正进入血液循环的原形槲皮素微乎其微。那么,是什么在决定槲皮素能否真正发挥作用?
答案藏在我们的肠道里。肠道菌群是槲皮素从”吃进去”到”用得上”的关键枢纽——它们分泌的糖苷水解酶将大分子、难吸收的槲皮素糖苷”拆解”为小分子、易吸收的活性苷元和酚酸代谢物,如二羟苯乙酸(DOPAC)等。没有这些微生物的”加工”,大量槲皮素只能作为无效成分随粪便排出。正因如此,个体间肠道菌群组成的差异,导致了槲皮素效果的”天壤之别”。
接下来,本文将带你全面了解槲皮素的健康益处、食物来源、肠道菌群的深层影响,以及如何才能更科学有效地补充槲皮素?让你摄入的每一口槲皮素都发挥出最大的价值。
槲皮素是什么?
槲皮素(Quercetin),又名栎精或槲皮黄素,是一种广泛存在于植物性食物中的天然化合物,属于黄酮类化合物大家族中的黄酮醇子类(这一类还包括山奈酚、杨梅素等),是人类膳食中重要的功能性植物成分之一。
注:槲皮素是植物界分布最广、最常见的黄酮醇类化合物。
槲皮素本身不提供能量,而是一种植物化学物质(植物次生代谢产物)。植物用它来对抗紫外线、病菌和氧化损伤。简单来说,它像是植物的“保护伞”,同时也赋予了果蔬鲜艳的颜色。
当人摄入后,它会在体内发挥多种生物学作用,因此被认为是一种具有潜在健康价值的天然活性成分。
✔ 槲皮素—分子结构
从化学结构上看,槲皮素具有典型的三环“黄酮骨架”(A、B两个芳香环与中间C环相连),并带有多个羟基(-OH),这些基团赋予其清除自由基的活性。
在自然界中,槲皮素多以与糖结合的糖苷形式存在(如槲皮素-3-O-葡萄糖苷),而去糖后的苷元才是纯槲皮素。糖苷形式水溶性更好、便于植物储存,苷元则更易穿透细胞膜但水溶性较差。
槲皮素的作用主要来自两大核心能力:抗氧化和调节炎症反应,并由此延伸至多个健康领域。下面我们整理了文献中较一致的结论,不过要注意:多数属于实验或临床前研究,具体效果强弱因人而异。
槲皮素的潜在应用
编辑
doi: 10.3390/ph16071020.
1
抗氧化作用(最基础、最重要)
我们的身体每天都会产生“自由基”——它们是代谢的副产物,但过多时会破坏细胞里的DNA、蛋白质和脂肪,导致“氧化应激”(和衰老、慢性病密切相关)。
✔ 中和自由基,减少氧化损伤
槲皮素的羟基能直接“中和”自由基(比如超氧阴离子O₂⁻、一氧化氮NO),还能激活身体自身的“抗氧化系统”:通过Nrf2-ARE信号通路(相当于细胞的“抗氧化开关”),让细胞产生更多“内源性抗氧化剂”(比如超氧化物歧化酶SOD、谷胱甘肽),从根源减少氧化损伤。
槲皮素的抗氧化、抗炎作用
编辑
doi.org/10.1002/fft2.50
此外,它还能“螯合”多余的铁离子——铁过量会引发自由基爆发,槲皮素能把铁“绑住”,避免细胞被“氧化灼伤”。
2
抗炎作用(几乎所有慢病的核心)
慢性炎症是很多疾病的根源之一,而槲皮素可以:
•抑制炎症通路:NF-κB、NLRP3炎症小体;
•降低炎症因子(如TNF-α、IL-6);
•调节免疫反应。
通俗理解,槲皮素可以把身体里“长期低烧的炎症状态”降下来。
槲皮素的抗炎信号通路
编辑
doi: 10.3390/ph16071020.
✔ 健康意义
槲皮素的这一特性对多种疾病可能具有潜在的辅助改善作用:
•例如慢性炎症性疾病等长期炎症相关问题;
•以及与代谢紊乱相关的代谢综合征;
•还包括涉及中枢或外周神经系统炎症反应的神经炎症等情况。
3
守护心血管,降低“血管硬化”风险
心血管疾病的关键诱因是血管内皮损伤(内皮是血管内壁的“保护膜”)和低密度脂蛋白(LDL)胆固醇氧化(氧化的LDL会钻进血管壁形成斑块)。
槲皮素的作用包括:
✔ 促进血管舒张:通过增加“一氧化氮(NO)”的释放,让血管平滑肌放松,降低血压(尤其是高血压或前期高血压患者,每天500mg以上剂量效果更明显)。
✔ 调节血脂:激活肝脏里的“胆固醇7α-羟化酶”(把胆固醇转化为胆汁酸排出),还能促进“反向胆固醇转运”(把血管壁的胆固醇运回肝脏代谢)。
✔ 抗血栓:抑制血小板聚集,减少血管堵塞的风险。
通俗理解:可以把槲皮素看作帮助血管维持“通畅、柔软且更有弹性”,从而降低发生堵塞的风险,让血液在血管中流动更加顺畅稳定。
4
保护神经,延缓大脑衰老
阿尔茨海默病、帕金森病等疾病的核心是神经元死亡(和氧化应激、淀粉样蛋白沉积有关)。槲皮素能穿过“血脑屏障”(很多药物进不去的大脑保护膜),通过:
✔ 抗氧化:减少多巴胺代谢产生的自由基(帕金森病患者脑内多巴胺能神经元易受损)。
✔ 抗淀粉样蛋白:阻止β-淀粉样蛋白(Aβ)聚集形成“老年斑”(阿尔茨海默病的典型病理特征)。
✔ 调节神经信号:激活MAPK/PI3K-Akt通路,保护神经元的结构和功能,改善记忆障碍。
编辑
doi: 10.3390/ijms24076328.
因此,槲皮素可能在一定程度上改善认知功能表现,并可能对延缓神经退行性疾病的发展过程产生帮助,如阿尔茨海默病、帕金森等相关疾病。
5
抗肿瘤潜力(研究较多)
癌症的本质是“细胞失控增殖”,而槲皮素能“精准打击”癌细胞,主要通过以下手段。
槲皮素对癌症主要信号通路的影响
编辑
doi: 10.3390/molecules29051000.
✔ 诱导凋亡:激活“半胱天冬酶(Caspase-3/9)”,让癌细胞“主动自杀”。
✔ 阻断增殖信号:抑制PI3K/AKT通路(癌细胞的“生长油门”),阻止它们无限分裂。
✔ 抗转移:减少“基质金属蛋白酶(MMP)”的分泌,不让癌细胞突破“围墙”转移到其他器官。
✔ 表观遗传调控:通过影响基因表达(比如关闭致癌基因、开启抑癌基因),抑制肿瘤的发生发展。
文献提到,槲皮素对乳腺癌(MCF-7细胞)、前列腺癌(LNCaP细胞)、胃癌(AGS细胞)等多种癌细胞都有抑制作用,甚至能和化疗药物(如SN-38)联用,增强药效并减少副作用。
但必须强调:目前主要是实验和辅助研究,还不能替代癌症正规治疗。
6
缓解过敏与哮喘,减轻呼吸道炎症
哮喘和过敏的核心是免疫系统过度反应:肥大细胞会释放组胺、白三烯等“炎症介质”,导致气道肿胀、黏液增多、呼吸困难。
✔ 槲皮素抑制组胺释放,调节Th1/Th2平衡
槲皮素能“按住”肥大细胞的“兴奋度”——抑制它们释放组胺;还能调节Th1/Th2平衡(免疫系统的两种“作战模式”,过敏时Th2过强),减少炎症因子(比如TNF-α、IL-6)的产生。
动物实验显示,给哮喘模型大鼠喂槲皮素糖苷,能显著降低气道里的炎症细胞(如嗜酸性粒细胞)数量,减轻支气管的高反应性(比如遇到刺激就喘)。
7
调节代谢(肥胖、糖尿病)
肥胖是“能量过剩+慢性炎症”的结果——脂肪细胞会分泌炎症因子(如TNF-α),加重代谢紊乱。槲皮素能:
✔ 抑制“脂肪生成”:下调脂肪酸合成酶(FAS)、乙酰辅酶A羧化酶(ACC)的基因表达,减少脂肪细胞的“变胖”。
✔ 促进“脂肪分解”:增加脂肪细胞里的“脂解作用”,把储存的脂肪变成能量消耗。
✔ 调节“脂肪因子”:减少炎症因子(如TNF-α),增加“脂联素”(帮助提高胰岛素敏感性的好因子)。
✔ 激活“产热通路”:通过AMPK/PPARγ通路上调“解偶联蛋白UCP1”,让白色脂肪(储能型)变成棕色脂肪(产热型),多燃烧热量。
2型糖尿病的核心是“胰岛素抵抗”(细胞对胰岛素不敏感)和“胰岛β细胞受损”。槲皮素能通过多种途径帮血糖“归位”:
✔ 激活AMPK通路(细胞的“能量传感器”):促进肌肉细胞里的“葡萄糖转运蛋白GLUT4”跑到细胞膜上,把血液里的葡萄糖“搬”进细胞(类似二甲双胍的作用)。
✔ 保护胰岛β细胞:减少氧化应激对β细胞的损伤,促进细胞再生。
✔ 抑制“醛糖还原酶”:糖尿病患者体内葡萄糖会转化为“山梨醇”堆积在眼睛里引发白内障,槲皮素能阻断这个反应。
✔ 改善“晚期糖基化终产物(AGEs)”:减少它们对血管、神经的损伤(比如糖尿病神经病变的麻木疼痛)。
槲皮素的药理疗效
编辑
doi: 10.3390/ph16111631.
小结:槲皮素的“天然优势”
槲皮素不是“神药”,但作为植物中的“天然防御物质”,通过多靶点、多通路的方式,帮身体应对氧化、炎症、代谢紊乱等问题,在多个系统(心血管、神经、代谢、免疫等)中发挥保护作用,因此被认为具有预防慢性疾病的潜力。
并且食物中的槲皮素(比如吃红洋葱、苹果)比补充剂更安全——因为食物里的糖苷形式吸收更高效,且和其他营养成分(如维生素C、膳食纤维)协同作用。
简单来说,槲皮素是“吃出来的健康帮手”——多吃富含它的果蔬,就是在给身体的“抗氧化盾牌”和“炎症刹车”助力。
槲皮素广泛存在于多种植物性食物中,主要来源可以按类别系统整理如下:
槲皮素的主要来源
编辑
doi.org/10.1007/s43450-022-00347-6
1
蔬菜类(含量较高、最主要来源之一)
•洋葱(尤其是红洋葱、紫洋葱,含量最高之一);
•西兰花;
•芦笋;
•菠菜;
•羽衣甘蓝;
•菊苣;
•生菜(深色叶菜更高);
•辣椒(尤其是青椒);
•西红柿(含量中等)。
2
水果类
•沙棘、山楂(含量较高);
•苹果(尤其是果皮中含量较高);
•浆果类:蓝莓、蔓越莓、黑莓;
•葡萄(特别是红葡萄);
•樱桃;
•芒果、李子、葡萄柚;
•柑橘类水果(含量相对较低但普遍存在)。
3
饮品类
•茶(尤其是绿茶、红茶);
•咖啡;
•葡萄汁、柠檬汁、番茄汁;
•红酒(来源于葡萄皮中的槲皮素)。
4
谷物与种子类
•荞麦(非常重要来源,含量较高);
•全谷物(如燕麦等,含量相对较低但稳定)。
5
草本与其他植物来源
•其他洋葱属植物(如大葱、韭菜);
•香菜;
•莳萝;
•其他食用植物叶片和外皮部分(通常富集更多)。
•另外,约有100多种药用植物(如槐米、侧柏叶、高良姜、款冬花、桑寄生、三七、银杏、接骨木等)中均含有此成分。
!
补充说明
总体来看,槲皮素主要来自日常的蔬菜、水果和饮品,是一种典型的“广泛存在但分布不均”的植物活性成分。
补充槲皮素并非简单地“吃进去多少,就能利用多少”,其最终能否被有效吸收并发挥作用,还会受到多种因素的共同影响和限制。
▸ 槲皮素在人体内的吸收与利用
槲皮素在自然界中主要以糖苷形式(如槲皮素-3-O-葡萄糖苷、芦丁等)存在,其吸收过程与葡萄糖苷键密切相关。
这一点非常关键,因为:
•不同糖基 → 决定吸收路径不同;
•生物利用度差异很大。
⑴ 释放与水解(胃肠道阶段)
膳食来源:富含槲皮素的食物如洋葱、苹果等,在胃酸环境下,部分糖苷可能开始解离。
在小肠中发生两条主要路径:
①路径A:刷状缘酶水解(最重要)
酶:乳糖苷酶/β-葡萄糖苷酶(LPH等)
过程:
槲皮素糖苷 → 去糖基 → 变为“游离槲皮素”,
随后通过被动扩散进入肠上皮细胞。
②路径B:转运体介导吸收
典型转运蛋白:
SGLT1(钠依赖葡萄糖转运蛋白)
OATP(有机阴离子转运体)
某些糖苷(如槲皮素-葡萄糖苷)可直接被转运进入细胞
重点:是否带“合适糖基”,直接影响吸收效率
结肠吸收(菌群依赖途径):多糖苷(如芦丁)和未被小肠吸收的糖苷进入结肠,依赖肠道菌群分泌的糖苷水解酶将其转化为苷元(后文将重点分析肠道菌群对槲皮素的影响)。
槲皮素在肠道中的吸收、代谢和运输
编辑
doi.org/10.1002/fft2.50
⑵ 肠上皮内“首过代谢”
刚被吸收后,槲皮素几乎不会以“原形”进入血液,而是迅速被转化:
主要代谢反应:
生成:
进入血液循环的主要是“结合型代谢物”,而非原型槲皮素。
⑶ 肝脏进一步代谢(系统性转化中心)
经门静脉进入肝脏后,再次经历强化的代谢,进一步提高:
随后两条路径:
① 进入体循环 → 分布组织;
② 经胆汁 → 回肠道(肠肝循环)。
意义:
槲皮素在肝脏中吸收、代谢和运输
编辑
doi.org/10.1002/fft2.50
⑷ 分布与排泄
代谢产物进入血液循环,分布至器官:
•肝、肾(最高)
•心、肺;
•脑(可跨血脑屏障)。
槲皮素吸收、代谢和体内消除过程
编辑
doi.org/10.1002/fft2.50
最终通过尿液(约5-10%)和胆汁(大部分)排泄。胆汁排泄的代谢物可能进入肠肝循环,再次被肠道菌群水解,延长作用时间。
▸ 槲皮素吸收利用中存在的主要问题
①极低的水溶性与化学不稳定性:槲皮素苷元脂溶性高但水溶性极差,且在生理pH下易氧化降解,这直接限制了其游离形式的生物利用度。
②广泛的首过代谢:如文献中所述,即使摄入高剂量(如50g洋葱或375mL茶),血浆中几乎检测不到原形槲皮素,全是代谢产物,这降低了其直接生物活性。
③吸收的饱和性:小肠的SGLT1转运体容量有限。当摄入高剂量时,吸收率可能反而下降。
④个体差异巨大:不同个体的肠道菌群组成、代谢酶活性(如COMT)差异导致对同一食物来源的槲皮素响应千差万别。
编辑
▸ 肠道菌群如何影响槲皮素的吸收利用?
肠道菌群对槲皮素的吸收利用并非简单的“辅助”,而是决定其最终生物活性的“重要开关”。这个过程本质上是菌群将大分子、难吸收的槲皮素糖苷“拆解”成小分子、易吸收且具有新活性的代谢产物的过程。
槲皮素在食物中大多以糖苷形式(如芦丁、异槲皮苷)存在。这些糖苷分子量大、极性高,无法直接通过小肠上皮细胞被动扩散吸收。如果肠道菌群缺失,这些物质将作为“无效成分”随粪便排出。菌群的作用就是通过酶切和裂解,将其转化为苷元和酚酸,使其具备跨膜吸收能力。
①第一步:去糖基化(活化)
这是吸收的前提。菌群分泌的糖苷水解酶切掉槲皮素分子上的糖链(如葡萄糖、鼠李糖),释放出活性苷元。
关键菌群包括以下几类:
•拟杆菌属(Bacteroides):如 B.uniformis, B.ovatus,擅长产生广谱糖苷酶。
•乳杆菌属(Lactobacillus)与双歧杆菌属(Bifidobacterium):部分菌株可产生β-葡萄糖苷酶/鼠李糖苷酶。
•大肠杆菌(E.coli)与肠球菌(Enterococcus):部分菌株也具备此功能。
具体作用:将芦丁→ 槲皮素-3-葡萄糖苷 → 槲皮素苷元。
如何影响吸收:苷元的脂溶性远高于糖苷,更易通过被动扩散或转运体进入肠上皮细胞。没有这一步,后续吸收无从谈起。
②第二步:C环裂解(降解)
苷元在结肠深处被特定菌群“拆解”骨架,这是生物利用度差异的最大来源。
关键菌群主要是专性厌氧菌:
•真杆菌属(Eubacterium):尤其是 E. ramulus(细枝真杆菌),这是人类肠道中最主要的槲皮素降解菌之一。它能将槲皮素C环裂解,生成3,4-二羟基苯乙酸(DOPAC)。
•梭菌属(Clostridium):如 C. orbiscindens, C.perfringens(产气荚膜梭菌)。它们能执行类似的裂解反应,生成DOPAC或3-(3,4-二羟基苯基)丙酸等。
•黄酮降解菌(Flavonifractor plautii):专门负责黄酮类化合物的C环裂解。
具体作用:槲皮素苷元 → 查耳酮中间体 → 酚酸(如DOPAC)。
如何影响吸收:苷元虽然能被吸收,但极易被肝脏代谢(首过效应)。而DOPAC等酚酸分子量小、水溶性好,吸收效率极高,且能避开部分首过代谢,直接进入体循环发挥全身作用。
③第三步:次级修饰(再加工)
生成的初级酚酸会被其他菌群进一步修饰,改变其生物活性。
具体作用:
•脱羟基:DOPAC(3,4-二羟基)→ 3-羟基苯乙酸或4-羟基苯乙酸。
•甲基化:生成异香草酸等。
这些修饰改变了代谢物的极性和稳定性,影响了其在体内的半衰期和靶点亲和力。
✔ 菌群协作与代谢产物图谱
肠道菌群是一个生态系统,它们通过“交叉喂养”协作完成代谢。例如,Bacteroides thetaiotaomicron本身不代谢槲皮素,但它能降解淀粉为葡萄糖,为 E.ramulus提供能量,从而促进后者对槲皮素的降解。
槲皮素在肠道内的典型代谢路径与产物:
编辑
✔ 菌群差异如何导致生物利用度“天差地别”
“降解型”菌群 vs “保守型”菌群:若个体肠道内富含 E. ramulus 和 梭菌,槲皮素会被迅速降解为二羟苯乙酸(DOPAC),尿液中酚酸排泄量高,全身可利用的活性代谢物多。
若个体缺乏这些裂解菌,槲皮素可能仅被去糖基化,吸收量有限,且多以原形在肝脏被结合排出。
“菌群-底物”匹配度:摄入芦丁(芸香糖苷)等复杂糖苷,完全依赖菌群的α-鼠李糖苷酶和β-葡萄糖苷酶。缺乏相应酶的菌群(如某些人群),芦丁的生物利用度很低。
摄入洋葱(富含槲皮素-4′-葡萄糖苷),小肠可直接吸收一部分,对菌群依赖较小,故生物利用度相对稳定。
小结:菌群影响的“双刃剑”
正面(增效):菌群将“无效”糖苷转化为高生物利用度的活性酚酸,这是槲皮素发挥抗炎(激活CD8+ T细胞)、神经保护等作用的关键步骤。
负面(失活):过度降解会将槲皮素彻底分解为简单酚酸,丧失其原有的强抗氧化活性(因破坏了共轭结构)。
因此,肠道菌群不仅是槲皮素的“吸收助手”,更是其“活性转化工厂”。个体菌群结构的差异(如普雷沃菌与拟杆菌的比例)直接决定了你吃下去的洋葱或浆果,最终有多少能真正转化为进入血液的“有效槲皮素”。
▸ 槲皮素对肠道菌群的具体影响
槲皮素本质上表现为一种“类益生元调节因子”,其核心作用机制是:选择性促进有益菌生长、抑制致病菌繁殖,同时增强菌群代谢产物(如短链脂肪酸)的生成,从而改善肠屏障功能、降低炎症反应并影响全身代谢过程。
槲皮素对肠道菌群的调节作用主要体现在以下几个方面:
⑴ 促进有益菌的生长
•双歧杆菌(Bifidobacterium)↑:多项研究(包括综述和动物实验)一致发现槲皮素可显著增加双歧杆菌数量。这类菌能产生乙酸和乳酸,抑制致病菌生长,促进肠屏障功能,从而改善肠道稳态。
•乳杆菌(Lactobacillus)↑:作为多酚干预后常见的增加菌属,乳酸杆菌能降低肠道pH值,产生抗菌物质,调节免疫功能。
普拉梭菌(Faecalibacterium prausnitzii)↑:作为重要的抗炎菌和丁酸主要来源菌,普拉梭菌能抑制NF-κB炎症通路,维持上皮细胞完整性。
•罗斯氏菌(Roseburia)↑:这是一类与代谢健康密切相关的产丁酸菌,其数量增加有助于改善代谢指标。
•Akkermansia muciniphila ↑(部分研究):作为一种黏液降解菌,Akkermansia muciniphila能促进黏液层更新,与肥胖改善和糖代谢改善密切相关。
⑵ 抑制有害菌/条件致病菌
•变形菌门(Proteobacteria)↓:作为肠道菌群失衡的关键标志菌门,变形菌门包含多种致炎菌。研究显示在小鼠中,槲皮素干预可显著降低变形菌门数量。
•大肠杆菌(Escherichia coli)↓:作为典型的内毒素(LPS)来源菌,大肠杆菌数量减少与炎症减轻和肠屏障功能改善相关。
•肠杆菌科(Enterobacteriaceae)↓:这类菌与代谢紊乱密切相关,其数量减少有助于改善代谢指标。
•梭杆菌科(Fusobacteriaceae)(部分下降):与炎症反应和肿瘤发生相关,部分研究显示槲皮素可降低其数量。
⑶ 恢复菌群多样性
菌群多样性是肠道健康的重要指标。文献研究显示,抗生素破坏后肠道菌群多样性显著下降,而槲皮素干预可使α多样性显著恢复。这表明槲皮素的核心作用之一是“把失衡菌群拉回健康结构”。
⑷ 对菌群代谢产物的影响
短链脂肪酸(SCFAs)↑:槲皮素干预可显著增加短链脂肪酸的生成,尤其是丁酸盐↑(最关键)、丙酸盐↑、乙酸盐↑。
动物研究显示,槲皮素干预后粪便丁酸盐水平显著增加。丁酸盐作为肠上皮细胞的主要能量来源,具有多种重要生理功能:增加紧密连接蛋白表达、降低炎症反应、调节免疫Treg细胞等。这是“菌群→宿主”相互作用的关键桥梁。
内毒素(LPS)↓:槲皮素通过减少大肠杆菌和变形菌门等内毒素产生菌的数量,显著降低肠道内毒素(LPS)水平。其结果是:
•降低全身炎症反应
•改善胰岛素抵抗
代谢通路改变:代谢组学研究显示,在小鼠中,槲皮素干预可引起多条代谢通路的改变,这些变化与糖脂代谢改善密切相关。
⑸ 对肠道屏障功能的影响
槲皮素对肠道屏障功能的改善作用主要体现在:
•紧密连接蛋白 ↑:ZO-1、Occludin和Claudin等紧密连接蛋白表达增加;
•肠通透性 ↓:D-乳酸和二胺氧化酶等肠通透性指标显著下降;
•肠道形态改善:绒毛长度增加,黏膜厚度增加。
槲皮素调节肠道微生物组成及肠道屏障保护
编辑
doi.org/10.1002/fft2.50
结果:有效防止”肠漏”发生,减少毒素进入血液循环。
总的来说,槲皮素可以通过促进有益菌、抑制致病菌、增强短链脂肪酸生成并修复肠屏障,将肠道从“炎症型生态”转向“稳态型生态”,进而对代谢、免疫乃至全身健康产生系统性益处。
随着对槲皮素研究的不断深入,人们逐渐发现其与多种药物之间存在较为复杂且多层面的相互作用,这些相互作用可能在一定程度上影响相关药物的疗效发挥,甚至增加不良反应发生的风险。
本章节将围绕槲皮素与不同类别药物之间的相互作用,从其潜在机制入手,结合相关研究结果,对其可能产生的影响及其在临床应用中的意义进行较为全面的介绍。
▸ 槲皮素与药物相互作用的基本机制
槲皮素与药物的相互作用主要通过以下三个途径实现:
⑴ 影响药物代谢酶系统(CYP450酶系)
槲皮素可抑制肝脏和肠道中的细胞色素P450(CYP450)酶系统,尤其是CYP3A4和CYP2C19。这些酶负责许多药物的代谢清除,当它们的活性被抑制时,药物在体内的代谢减慢,导致血药浓度升高,可能增强药效或增加毒性风险。
编辑
⑵ 干扰药物转运蛋白功能
槲皮素可抑制多种药物转运蛋白,包括:
OATP(有机阴离子转运蛋白):如OATP1B1、OATP1B3,主要负责药物从血液进入肝细胞的摄取过程。
P-gp(P-糖蛋白):主要在肠道、肾脏和血脑屏障中表达,负责将药物从细胞内泵出。
BCRP(乳腺癌耐药蛋白):参与多种抗癌药物的外排过程。
MRP2(多药耐药相关蛋白2):参与药物及其代谢物的排泄。
这些转运蛋白被抑制后,会改变药物的吸收、分布和排泄过程,导致血药浓度异常变化。
⑶ 药效学协同或拮抗作用
槲皮素本身具有抗氧化、抗炎、降糖等生物活性,与具有相似或相反作用的药物联用时,可能产生协同或拮抗效应,增强或减弱药物疗效。
简单来说,槲皮素通过“抑制代谢+改变转运+协同药效”这三种方式,影响药物在体内的吸收、分布、代谢和排泄,从而改变药物的血药浓度(AUC)和最终疗效/毒性。
1
槲皮素与抗癌药物的相互作用
槲皮素与抗癌药物的相互作用具有“双刃剑”特性,既可能增强疗效,也可能增加毒性风险。
✔ 作用机制总结:
槲皮素通过以下途径影响抗癌药物效果:
•抑制P-gp和BCRP表达,逆转肿瘤细胞的多药耐药性。
•增加caspase-3活性和Bax/Bcl-2比值,促进肿瘤细胞凋亡。
•减少ROS相关损伤,发挥抗氧化保护作用。
•抑制NF-κB通路,增强抗炎和抗肿瘤效果。
槲皮素与抗肿瘤药物用于治疗癌症
编辑
doi.org/10.1007/s43450-022-00347-6
2
槲皮素与降糖药物的相互作用
槲皮素本身具有一定的降糖活性,与降糖药物联用时可能产生协同效应,增强降糖效果,但有时也会增加低血糖风险。
编辑
✔ 临床意义:糖尿病患者在服用降糖药物期间,若同时使用槲皮素补充剂,应密切监测血糖变化,警惕低血糖发生,必要时调整药物剂量。
3
槲皮素与抗生素的相互作用
槲皮素与抗生素的相互作用较为复杂,可能增强或减弱药效,或影响药物代谢。
编辑
特别提示:槲皮素还可通过改变肠道菌群组成影响口服抗生素的代谢和吸收,可能导致药效不稳定。
4
槲皮素与心血管药物的相互作用
槲皮素与多种心血管药物存在显著相互作用:
编辑
!极高风险组合:地高辛与槲皮素的相互作用已在动物实验中证实可导致猝死,临床应避免合用。
5
槲皮素与降脂药物(他汀类)的相互作用
他汀类药物是CYP3A4和OATP的底物,易受槲皮素影响。
编辑
✔ 临床建议:服用他汀类药物的患者,若同时使用槲皮素补充剂,应密切监测肌痛、乏力等症状,定期检查肌酸激酶(CK)水平,警惕肌病和横纹肌溶解症的发生。
6
槲皮素与精神药物的相互作用
编辑
7
槲皮素与凝血药物的相互作用
槲皮素具有抑制血小板聚集和抗凝血作用,与抗凝药物联用时可能增加出血风险。
编辑
!特别警告:华法林与槲皮素的相互作用具有高度风险,可能导致严重出血事件,临床上应避免将高剂量槲皮素与华法林联用。
▸ 槲皮素药物相互作用的特点与风险因素
⑴ 剂量依赖性
槲皮素和药物相互作用具有明显的剂量依赖性:
膳食摄入(低剂量):日常饮食中摄入的槲皮素(如每天食用洋葱、苹果等)剂量较低(通常为数毫克至数十毫克),一般不会产生显著的药物相互作用。
补充剂(高剂量):当槲皮素以补充剂形式高剂量摄入时(通常为500mg/天以上),药物相互作用风险显著增加,可能产生临床意义的影响。
⑵ 个体差异大
不同个体对槲皮素与药物相互作用的反应存在显著差异,主要影响因素包括:
肠道菌群组成:肠道菌群可代谢槲皮素,不同菌群结构可能导致槲皮素代谢产物和暴露量的差异。
基因多态性:CYP450酶系(如CYP3A4、CYP2C19)和转运蛋白的基因多态性可影响其活性,导致药物代谢和转运的个体差异。
基础疾病状态:肝肾功能不全可能影响槲皮素和药物的代谢排泄,增加相互作用风险。
⑶ “体外强,体内不一定强”
许多槲皮素的药物相互作用在体外实验中显示显著效果,但在人体研究中可能观察不到同等程度的影响。这是因为:
•槲皮素在体内会被快速代谢,生物利用度较低;
•体外实验中槲皮素浓度通常高于体内可达到的实际浓度;
•肠道首过效应和组织分布特性可能减弱其体内作用。
因此,不能单纯根据体外研究结果推断槲皮素在人体内的药物相互作用强度。
小编的话
槲皮素是一种具有多种生物活性的天然黄酮类化合物,通过抑制CYP450代谢酶、干扰转运蛋白功能和产生药效学协同/拮抗作用,可与多种药物发生相互作用。这些相互作用在高剂量补充剂使用时尤为显著,可能影响药物疗效或增加不良反应风险,尤其是与地高辛、华法林、降糖药和抗癌药等联用时需特别谨慎。
对于大多数健康人群,通过日常饮食适量摄入槲皮素是安全的,无需过度担忧。但对于需要长期服用药物的慢性病患者,特别是服用上述高风险药物的人群,应避免自行使用槲皮素补充剂,必要时在医生指导下使用,并进行密切监测,以确保用药安全有效。
槲皮素作为一种广泛存在于天然食物中的多酚类活性成分,其摄入方式与体内利用效率近年来逐渐受到关注。尽管槲皮素具有多种潜在健康益处,但其实际生物效应在很大程度上受到吸收效率、生物利用度及个体差异的限制。
基于此,有必要对槲皮素的合理摄入途径、补充剂使用时机以及提高其利用率的关键因素进行系统梳理,以更科学地指导其在营养与健康管理中的应用。
吃进去≠被身体用上
在讨论”怎么补”之前,我们必须面对一个重要的科学事实——槲皮素的口服生物利用度极低。
原因包括:
所以,补充槲皮素的核心逻辑从来不是”吃多少”,而是”吃对形式 + 吃得更容易被吸收 + 让肠道菌群帮你加工“。接下来的内容都围绕这个逻辑展开。
1
从天然食物获取:最安全、最推荐的基础方式
✔ 哪些食物富含槲皮素?
槲皮素广泛存在于植物性食物中,但含量差异巨大。以下数据来自数据库及文献汇总:
槲皮素的主要来源
编辑
doi: 10.3390/ph16071020.
编辑
几个值得记住的要点:
✔ 怎么吃才能留住更多槲皮素?
知道吃什么只是第一步,怎么吃同样关键——甚至更关键。
第一,少加工、少去皮: 槲皮素集中在植物表皮和外层组织中。苹果带皮吃、洋葱只去最外层干皮,是最简单的保量策略。煮沸会显著降低槲皮素含量,储存12天的洋葱会损失约33%。因此,优先选择生食,若需烹调,应以快炒或短时蒸煮为宜。
第二,搭配一点脂肪:槲皮素虽非典型脂溶性物质,但具有较强脂溶性,与膳食脂肪同服可使其生物利用度提高约2倍。实际应用中无需精确控制脂肪摄入,简单搭配如橄榄油拌洋葱、西兰花配坚果或苹果蘸花生酱即可。
第三,长期规律摄入远比一次猛吃重要: 口服槲皮素糖苷后,消除半衰期约为11–28小时,这意味着它不会在体内长期蓄积。一次性大量摄入后其水平会迅速回落,而每日少量、持续补充更有助于维持稳定血药浓度,从而发挥抗炎和抗氧化作用。
✔ 天然食物的隐性优势
为什么始终推荐以食物为基础?不只是因为”天然”这个标签,而是有实实在在的科学理由:
简而言之,日常保健和轻度抗炎需求,食物完全够用。
2
补充剂:什么时候才真正有意义?
✔ 谁需要考虑补充剂?
如果你的情况属于以下任何一种,单纯靠食物可能不够:
✔ 补充剂的最大痛点:吸收差
普通槲皮素苷元补充剂面临和食物一样的问题——甚至更严重,因为食物中的糖苷形式反而比苷元更容易吸收。
好在,科学的进步已经提供了一些解决方案:
①先进制剂
编辑
②改变化学形式:槲皮素寡糖苷比苷元吸收率高约 20 倍,比芦丁高 10 倍,比单糖苷高 2 倍。这实际上更接近天然食物中槲皮素的存在形式。
③简单搭配策略:
✔ 安全上限
推荐每日最大剂量为1200mg。1000 mg/天持续 12 周的临床试验未观察到显著副作用,但超过12周的长期安全性数据目前仍然缺乏。
高剂量(>1 g/天)可能引起头痛、胃肠不适、四肢刺痛感,长期大剂量还可能增加肾结石风险(与草酸盐代谢物有关)。此外,槲皮素可抑制甲状腺过氧化物酶和 5′-脱碘酶 I 型,甲状腺功能异常者需格外谨慎。
3
被严重低估的关键变量:肠道菌群
未被小肠吸收的槲皮素进入结肠后,需要特定肠道细菌将其”拆解”为更小的活性分子。目前已鉴定出多个关键菌种:
这些细菌产生的代谢产物——二羟苯乙酸(DOPAC)、原儿茶酸、3-(3,4-二羟基苯基)丙酸等——是槲皮素在体内发挥许多生物学效应的重要”功臣”。
✔ 菌群代谢物增强抗肿瘤免疫
2025 年发表在 Cell Metabolism 上的研究揭示了一个令人振奋的机制:槲皮素被肠道菌群代谢产生的 二羟苯乙酸(DOPAC),可通过激活 KEAP1-NRF2 通路增强 CD8⁺ T 细胞的抗肿瘤免疫功能,并与免疫检查点阻断疗法产生协同效应。
这意味着,槲皮素的抗癌潜力可能高度依赖于你的肠道菌群能否将它转化为 DOPAC。
✔ 个体差异较大
由于每个人的肠道菌群组成不同,对槲皮素的代谢能力存在巨大差异。抗生素破坏菌群后,槲皮素的生物活性显著降低。这解释了一个常见困惑:为什么有人吃了槲皮素觉得效果明显,有人却毫无感觉——不是槲皮素没用,而是你的菌群”加工厂”产能不同。
✔ 怎么优化?养好你的菌群
好消息是,槲皮素与肠道菌群的关系是双向的:槲皮素也能反过来调节菌群组成——降低厚壁菌门/拟杆菌门比值,增加 Akkermansia、双歧杆菌和乳杆菌等有益菌。但要启动这个正向循环,你需要同时做好两件事:
一句话总结:养菌群就是养槲皮素的效果。
✔ 黄金搭配:让槲皮素发挥更大效用
槲皮素 + 维生素C:这是最经典、证据最充分的组合。维生素C不仅能与槲皮素产生协同抗氧化效应,还能稳定槲皮素分子、减缓其氧化降解。
槲皮素 + 多酚:天然食物中,槲皮素从不孤军奋战。白藜芦醇、儿茶素(绿茶)、花青素(浆果)等多酚类与槲皮素存在协同抗炎效应。与其追求单一成分的高剂量,不如通过多样化的植物性饮食构建一个”多酚朋友圈”。
槲皮素 + 膳食脂肪:搭配脂肪可提升约2倍生物利用度。不需要大量油脂,一小勺橄榄油或几颗坚果即可。
一句话总结
槲皮素不是”吃得越多越好”的简单营养素,而是一个依赖吸收效率和肠道菌群加工的功能性成分。
最优策略是:以天然食物为根基,用科学搭配提升吸收,在特定需求下谨慎选择高生物利用度补充剂——同时,永远别忘了照顾好你肠道里那些默默帮你”加工”槲皮素的小小细菌。
来自蔬菜水果中的槲皮素作为一种天然多酚类活性成分,在抗氧化、抗炎、心血管保护、神经保护、抗肿瘤及代谢调节等领域展现出了广泛的潜在益处。
肠道菌群对槲皮素而言是一个精密的活性转化工厂。与此同时,槲皮素也能反过来调节菌群组成,促进有益菌增殖、抑制致病菌、增加短链脂肪酸生成并修复肠屏障,形成一个双向互促的循环。
个体菌群特征可以预判个体对槲皮素的代谢能力,例如关键降解菌(如E. ramulus、Flavonifractor plautii等)的丰度,从而实现”因人制宜”的个性化推荐。
未来槲皮素菌群代谢产物的药理活性值得更深入的研究,尤其是在抗肿瘤免疫、神经保护等方面的具体机制和临床转化潜力。此外,如何通过益生元、益生菌或菌群移植等手段定向优化肠道菌群,以提升槲皮素的生物利用度,值得持续关注和探索。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Mirza MA, Mahmood S, Hilles AR, Ali A, Khan MZ, Zaidi SAA, Iqbal Z, Ge Y. Quercetin as a Therapeutic Product: Evaluation of Its Pharmacological Action and Clinical Applications-A Review. Pharmaceuticals (Basel). 2023 Nov 20;16(11):1631.
Yang D, Wang T, Long M, Li P. Quercetin: Its Main Pharmacological Activity and Potential Application in Clinical Medicine. Oxid Med Cell Longev. 2020 Dec 30;2020:8825387.
Carrillo-Martinez EJ, Flores-Hernández FY, Salazar-Montes AM, Nario-Chaidez HF, Hernández-Ortega LD. Quercetin, a Flavonoid with Great Pharmacological Capacity. Molecules. 2024 Feb 25;29(5):1000.
Aghababaei F, Hadidi M. Recent Advances in Potential Health Benefits of Quercetin. Pharmaceuticals (Basel). 2023 Jul 18;16(7):1020.
Zou H, Ye H, Kamaraj R, Zhang T, Zhang J, Pavek P. A review on pharmacological activities and synergistic effect of quercetin with small molecule agents. Phytomedicine. 2021 Nov;92:153736.
Batiha GE, Beshbishy AM, Ikram M, Mulla ZS, El-Hack MEA, Taha AE, Algammal AM, Elewa YHA. The Pharmacological Activity, Biochemical Properties, and Pharmacokinetics of the Major Natural Polyphenolic Flavonoid: Quercetin. Foods. 2020 Mar 23;9(3):374.
Chiang MC, Tsai TY, Wang CJ. The Potential Benefits of Quercetin for Brain Health: A Review of Anti-Inflammatory and Neuroprotective Mechanisms. Int J Mol Sci. 2023 Mar 28;24(7):6328.
doi.org/10.1002/fft2.50
doi.org/10.1007/s43450-022-00347-6
Yuan M, Sun T, Zhang Y, Guo C, Wang F, Yao Z, Yu L. Quercetin Alleviates Insulin Resistance and Repairs Intestinal Barrier in db/db Mice by Modulating Gut Microbiota. Nutrients. 2024 Jun 14;16(12):1870.
Deepika, Maurya PK. Health Benefits of Quercetin in Age-Related Diseases. Molecules. 2022 Apr 13;27(8):2498.
Nie J, Zhang L, Zhao G, Du X. Quercetin reduces atherosclerotic lesions by altering the gut microbiota and reducing atherogenic lipid metabolites. J Appl Microbiol. 2019 Dec;127(6):1824-1834.
Ulusoy HG, Sanlier N. A minireview of quercetin: from its metabolism to possible mechanisms of its biological activities. Crit Rev Food Sci Nutr. 2020;60(19):3290-3303.
Almeida AF, Borge GIA, Piskula M, Tudose A, Tudoreanu L, Valentová K, Williamson G, Santos CN. Bioavailability of Quercetin in Humans with a Focus on Interindividual Variation. Compr Rev Food Sci Food Saf. 2018 May;17(3):714-731.
Shi T, Bian X, Yao Z, Wang Y, Gao W, Guo C. Quercetin improves gut dysbiosis in antibiotic-treated mice. Food Funct. 2020 Sep 23;11(9):8003-8013.
Chen X, Pan S, Li F, Xu X, Xing H. Plant-Derived Bioactive Compounds and Potential Health Benefits: Involvement of the Gut Microbiota and Its Metabolic Activity. Biomolecules. 2022 Dec 13;12(12):1871.
Oh JH, Lee JH, Lee YJ. Evaluation of the Mrp2-mediated flavonoid-drug interaction potential of quercetin in rats and in vitro models. Asian J Pharm Sci. 2019 Nov;14(6):621-630.
Mohos V, Fliszár-Nyúl E, Ungvári O, Kuffa K, Needs PW, Kroon PA, Telbisz Á, Özvegy-Laczka C, Poór M. Inhibitory Effects of Quercetin and Its Main Methyl, Sulfate, and Glucuronic Acid Conjugates on Cytochrome P450 Enzymes, and on OATP, BCRP and MRP2 Transporters. Nutrients. 2020 Jul 31;12(8):2306.
Tamura M, Hoshi C, Kobori M, Takahashi S, Tomita J, Nishimura M, Nishihira J. Quercetin metabolism by fecal microbiota from healthy elderly human subjects. PLoS One. 2017 Nov 27;12(11):e0188271.
谷禾健康
在谷禾大量人群肠道菌群测序数据中,一个反复出现的现象逐渐引起关注:拟杆菌往往占据主导地位。更耐人寻味的是,即便在饮食剧烈改变、疾病发生,甚至经过益生菌等干预后,肠道生态发生明显波动,这一“核心类群”却依然保持稳定,难以被真正取代。这不禁让人思考:拟杆菌为何具有如此强的“稳态优势”,它在肠道生态中究竟扮演着怎样的角色?
肠道微生态是一个长期维持稳态的复杂生态系统,而拟杆菌作为其中的关键类群,具有较强的环境适应能力、代谢灵活性和长期定植能力,总是在群落中占据重要地位。
拟杆菌之所以常常占主导,不只是因为它多,还因为它同时掌握了“食物从哪来、怎么分给其他肠道菌群、还要怎么和身体打交道”这三件最关键的事。
1
极强的“吃饭能力”—碳源入口
拟杆菌最突出的能力是分解复杂多糖,如膳食纤维、植物细胞壁和黏液等。
• 具备丰富的多糖利用位点,可代谢多种碳水化合物
拟杆菌拥有大量多糖利用位点(PULs),每一个 PUL相当于一套“识别+运输+降解”复杂多糖的完整系统。可以针对不同来源碳水(植物、藻类、宿主黏液)进行定制化利用。
研究发现,拟杆菌是肠道中最重要的复杂碳水降解者之一,参与宿主能量获取,并影响代谢效率。
通俗来说,其他菌较为挑食,而拟杆菌几乎能利用各种复杂底物,兼具分解与供能功能,因此在典型的现代高碳水、结构复杂的饮食条件下更具优势。
2
是“代谢网络的重要起点”
拟杆菌在维持肠道微生态稳态中具有”结构性作用”,不仅自身代谢,还支撑其他菌生长。
• 拟杆菌能够支持肠道内其他菌生长
拟杆菌是”交叉喂养(cross-feeding)网络的起点”。它分解复杂多糖后释放出寡糖、单糖和代谢中间产物(如乙酸、丙酸),这些物质可以被其他菌(如厚壁菌门)进一步利用。
因此,拟杆菌不仅是一个物种,更像是一种”生态功能层”,通过“喂养”整个菌群的一大部分成员来维持其核心地位。
3
能利用两种资源:外源饮食+内源宿主
拟杆菌具有利用宿主来源底物的能力,是其长期定植的重要原因。大多数菌只能依赖外源饮食,而拟杆菌具有独特的“双资源通道”:
• 外源资源:膳食纤维、多糖等饮食成分。
• 内源资源:肠道黏液糖蛋白等宿主自身成分。
通俗地说:它不是依赖你吃的食物活,而是”部分依赖你身体本身”活。这意味着:你吃得好→它活得好;你不吃(节食/低碳)→它还能活。
4
深度参与”宿主调控系统”
拟杆菌不仅是肠道中的”乘客”,更像”调控者”,深度参与宿主多个生理系统的调节:
• 免疫系统训练:调节Treg细胞,影响炎症水平。
• 肠道屏障维护:促进黏液层动态平衡。
• 代谢信号调控:产生SCFAs(尤其丙酸),影响肝脏糖脂代谢。
拟杆菌被认为在免疫调节和代谢稳态中具有核心作用。
拟杆菌是成人肠道菌群的核心类群之一,经过长期筛选而稳定存在。其兼具对宿主有益(代谢与免疫)、可长期定植以及耐受环境波动(厌氧环境适应强、能耐受胆汁、能黏附肠黏膜)等特征,因此可视为被宿主选择保留的菌群。
5
对”现代饮食结构”具有额外优势
• 现代饮食结构更利于拟杆菌而不是普雷沃氏菌
拟杆菌在很大程度上可以被视为“现代饮食的受益者”。在以高蛋白、高脂以及精加工碳水为特征的现代饮食结构中,食物残渣不仅来源多样,而且分子结构复杂,这类底物更符合拟杆菌的代谢特点和生存需求,使其更容易占据优势地位。
相较之下,这种饮食环境则不利于一些代谢底物较为单一、依赖特定碳源的专一型菌群(如Prevotella)的生长与维持。
并且,拟杆菌与普雷沃氏菌之间还存在相互拮抗的关系,二者属于彼此对立、相互制约的菌属。
小编的话
拟杆菌之所以能够成为主导菌群,是因为它在肠道生态中同时占据并调控了多个关键层面。首先在上游,它掌握了复杂碳水进入代谢体系的“入口”;在中游,它参与并影响菌群整体的能量流动与分配;在下游,它进一步作用于宿主的代谢过程和免疫调控。
除此之外,拟杆菌还能够利用宿主来源的资源,并具备良好的环境适应能力,从而在波动条件下保持稳定。这些多层功能的协同作用,使其成为肠道菌群的重要主导类型。
在人体肠道微生态中,拟杆菌虽被视为关键类群,但其在不同人群中的丰度却呈现出显著差异,甚至可达“群体特征”的程度,这种差异可以从下面几个层面理解。
人类肠道微生物在门级和属级的全球分布与丰度
doi: 10.1038/nmicrobiol.2017.26.
1
饮食差异(最重要因素)
饮食是微生物组多样性的主要驱动力。最近的遗传学研究强调了宿主基因型在确定肠道微生物组中特定类群的相对丰度方面的重要性,但很少有拟杆菌受到宿主遗传学的影响(即是可遗传的)。这意味着,对于该门的大多数成员来说,环境因素(包括饮食)决定了它们在宿主中的相对丰度。
编辑
• 西式饮食人群拟杆菌比例更高
饮食研究报告了粪便中拟杆菌的相对丰度与富含动物性食物(高脂肪、高蛋白)和低纤维饮食之间的关联。粪便高拟草菌丰度与富含蛋白质和动物脂肪的饮食呈正相关,与纤维摄入负相关。
•高蛋白/高脂饮食(西方饮食)→拟杆菌比例 ↑
•高纤维/高多样植物饮食→Prevotella比例 ↑
不过,从长期来看,较高纤维摄入也可能与拟杆菌的稳定优势相关,提示其对不同饮食结构具有一定适应性。因此,最明确的结论是:短期内,高脂肪、高蛋白、低纤维的动物性饮食最直接促进拟杆菌升高,而长期影响则更为复杂。
• 营养过剩可能会减少拟杆菌
拟杆菌被发现对过度营养较为敏感。研究中发现,将肥胖与瘦个体分别置于体重维持或过量饮食(2400与3400千卡/天)下,瘦者在过量喂食后粪便中拟杆菌减少约20%,同时能量吸收增加约150千卡;类似结果也见于芬兰单卵双胞胎,过量能量摄入与拟杆菌减少相关。
相反,胃旁路手术后拟杆菌增加,可能与能量负荷降低而非体重变化有关。这些结果表明,营养状态可调节拟杆菌丰度并影响能量获取效率,这也与早期在肥胖模型中观察到的低拟杆菌水平以及节食时其升高的现象一致。
注:有研究发现健康成年人中,较高的饮食质量评分与拟杆菌丰度呈负相关。
• 营养不良也可能影响拟杆菌丰度
研究显示营养不良对拟杆菌丰度的影响并不一致。在孟加拉儿童中,营养不良通常伴随拟杆菌减少,但不同成员变化不同,例如Prevotella在健康儿童中更丰富,而部分拟杆菌在营养不良者中反而增加。
另一研究也发现,营养不良儿童中B.fragilis、B.galacturonicus和P. copri等菌减少。拟杆菌的缺乏可能通过降低多糖发酵和短链脂肪酸生成能力而加重营养不良。
动物研究提供了更可控的证据:小鼠禁食1–3天时,拟杆菌门比例显著升高。但不同分类单元对进食模式反应不一,例如限制进食时间的大鼠中,Prevotella增加而拟杆菌门总体下降,反映出该类群内部存在复杂而差异化的动态变化。
• 拟杆菌丰度还可能随昼夜和季节变化
研究表明肠道微生物组会随饮食的昼夜节律呈现相应波动。小鼠禁食期间拟杆菌在白天达到峰值,而夜间进食时下降;但不同研究结果并不一致。在缺失宿主生物钟的小鼠中观察到,无论进食安排在昼或夜,菌群丰度均在12小时内达到峰值。
在人类中,副杆菌属的最低丰度通常出现在午夜。这些昼夜变化与进食模式之间的关系仍有待进一步阐明。
在饮食结构基本稳定、但夏季新鲜农产品增加的群体中,拟杆菌比例由冬季的11%升至夏季的30%,可能与更复杂的碳水化合物摄入有关。
门级分类单元的丰度因季节而异
编辑
doi: 10.1371/journal.pone.0090731.
• 吸烟和饮酒会增加拟杆菌丰度
随着酒精摄入增加,拟杆菌的相对比例往往上升;与此同时,这种能量来源却与厚壁菌门的丰度呈负相关,即其水平可能随之下降。
吸烟人群的肠道微生物组成也表现出类似的变化趋势:拟杆菌的相对丰度增加,而厚壁菌门以及变形杆菌的水平则相应减少。
2
地理与气候因素
• 低纬度地区拟杆菌丰度较高
研究表明,地理纬度与拟杆菌的相对比例之间存在一定相关性。一项涵盖1020名健康个体、跨越23个不同人群的研究显示,拟杆菌的相对丰度随纬度升高而显著下降,与之相对的厚壁菌门则呈上升趋势,这种分布格局甚至被认为与能量获取策略的生态适应有关。
同时,各地人群的能量需求也可能不同,如高纬度地区更依赖脂肪供能,而低纬度地区则更多依赖碳水化合物,这些因素共同影响了拟杆菌的丰度分布。
与此同时,多组学研究表明,肠道菌群虽在个体间高度独特,但在家庭或生活方式相似的人群中具有一定相似性,并在不同地理与饮食背景下显著分化。
3
个体早期定植(”起跑线不同”)
肠道菌群有很强的”路径依赖”,早期生活事件会决定最初的”菌群底盘“:
• 出生方式(顺产vs剖腹产):顺产婴儿在通过产道时会接触母体阴道和肠道菌群,更容易早期定植拟杆菌。
• 婴儿喂养(母乳vs配方奶):母乳中的低聚糖等成分有助于促进特定肠道菌群的建立,包括拟杆菌。
• 抗生素暴露:抗生素暴露通常会显著扰动拟杆菌的丰度,但具体影响取决于抗生素类型、剂量和使用时间。
而拟杆菌一旦在早期建立优势,很容易长期维持这一优势地位。
4
宿主基因与免疫系统
个体间的基因差异导致:
• 黏液成分不同;
• 免疫识别差异;
• 胆汁酸代谢差异。
这些因素都会影响”哪类菌更容易被允许长期存在”,从而导致拟杆菌比例的个体差异。
5
生活方式(被严重低估的因素)
包括压力、睡眠、运动和药物使用(特别是抗生素、质子泵抑制剂)等生活方式因素都会影响拟杆菌比例。研究指出,很多菌群研究结果的差异来自”未控制生活方式变量“。
• 压力
慢性心理或生理压力可通过“肠-脑轴”调节肠道菌群:一方面,皮质醇等压力激素会改变肠道通透性与免疫反应并增加炎症;另一方面,还会影响肠道蠕动与分泌功能。这些变化不利于厌氧菌群稳定,可能导致拟杆菌丰度下降或波动加剧,并促进部分机会致病菌扩张。
• 睡眠
睡眠节律紊乱会干扰宿主的昼夜节律,进而影响肠道微生物的周期性变化。拟杆菌具有一定的昼夜波动特征,睡眠不足或昼夜颠倒可打乱其增殖节律,导致丰度下降或节律减弱。同时,睡眠不足还与炎症升高和代谢紊乱相关,从而间接影响其生态位。
• 运动
适度运动可提升肠道菌群多样性并改善代谢环境(如促进短链脂肪酸代谢),使拟杆菌丰度更稳定甚至增加;而过度训练可能引发应激反应和肠道通透性升高,反而不利于拟杆菌,呈现双向效应。
• 药物使用
抗生素是影响最直接且显著的因素之一。广谱抗生素会降低肠道菌群多样性,并明显抑制甚至短期清除拟杆菌;其恢复速度和程度因人而异,可能导致长期丰度变化或群落重塑。
质子泵抑制剂(PPI)通过抑制胃酸、提高胃内pH,削弱上游屏障,使更多口腔或外源细菌进入肠道,从而改变微生态结构,通常降低拟杆菌的相对优势,并增加其他菌群比例。
6
体质指数(BMI)
已经有不少研究分析了体质指数(BMI)与肠道微生物组成之间的关系,重点分析厚壁菌门(Firmicutes)与拟杆菌门(Bacteroidetes)的比例(F/B比值)。
• 肥胖人群中的拟杆菌门可能比例减少
不同BMI类别中主要微生物的相对丰度
编辑
doi: 10.1186/s12866-017-1027-1.
结果显示,随着BMI升高,厚壁菌门丰度增加、拟杆菌门减少,导致F/B比值显著升高,并且该比值与肥胖呈显著正相关,即使在控制年龄、性别、吸烟和体力活动等因素后仍成立。但不同人群中结果存在差异,可能与饮食和环境因素有关。
7
肠道疾病(溃疡性结肠炎)
编辑
肠道疾病,尤其是溃疡性结肠炎,与拟杆菌的“降低和多样性丧失”密切相关。这种变化不仅反映疾病状态,还可能参与疾病发生发展。
• 溃疡性结肠炎患者中拟杆菌丰度降低
在溃疡性结肠炎(UC)患者中,拟杆菌整体多样性和丰度明显降低。研究显示,与健康对照相比,UC患者中至少6种拟杆菌显著减少,同时有12种拟杆菌与疾病活动度指标(如炎症水平、临床评分)显著相关。这说明拟杆菌的减少不仅是“伴随现象”,还与疾病严重程度直接相关。
12种关键拟杆菌与UC相关基因表达热图
编辑
doi: 10.3390/jcm10081749.
从现有研究与人群数据来看,在成人肠道中较为常见的主导拟杆菌种主要包括:多形拟杆菌(Bacteroides thetaiotaomicron)、卵形拟杆菌(Bacteroides ovatus)、单形拟杆菌(Bacteroides uniformis)、脆弱拟杆菌(Bacteroides fragilis)以及粪便拟杆菌(Bacteroides stercoris)。
这些菌种在不同个体中可以形成“优势替代”关系,即在总体拟杆菌占比相似的情况下,具体主导菌种却截然不同。它们在功能上既有重叠又各具特色。
1
多形拟杆菌(B. thetaiotaomicron)
首先,多形拟杆菌(B. thetaiotaomicron)是多糖利用能力突出的代表,以强大的多糖降解能力和生态适应性著称。
其具有以下核心特点:
•强大的多糖利用能力:基因组编码超过226种糖苷水解酶和15种多糖裂解酶,可降解超过20种不同的植物多糖,包括木聚糖、果胶、葡甘露聚糖等。其163个SusC/SusD同源物(外膜多糖结合蛋白)构成了复杂的多糖识别系统。
•宿主多糖利用:当膳食多糖缺乏时,多形拟杆菌可转向利用宿主黏液聚糖,通过上调己糖胺酶、α-岩藻糖苷酶和唾液酸酶等基因,降解肠道黏液层中的糖蛋白。这种能力使其在营养匮乏时仍能维持生存。
•肠道发育调控:多形拟杆菌可刺激肠道血管生成(通过血管生成素-3)、促进上皮细胞成熟(上调SGLT-1等营养吸收相关基因),并增强肠道屏障功能(诱导紧密连接蛋白表达)。
•免疫调节:通过PPARγ依赖性通路抑制促炎基因(如NF-κB)的转录,减少肠道炎症反应。其外膜囊泡可递送免疫调节分子,促进调节性T细胞(Treg)分化。
注:但在炎症环境中,其代谢产物也可能被机会致病菌利用,体现出典型的“双刃剑”特征。
2
卵形拟杆菌(B. ovatus)
其次,卵形拟杆菌(B. ovatus)同样具备强大的多糖降解能力,特点在于广谱底物利用,并具有潜在的神经递质调节作用。
其具有以下核心特点:
•多糖代谢专家:可降解超过30种植物多糖,包括果胶、菊粉、阿拉伯木聚糖等,对多糖代谢具有优先级,优先利用均聚半乳糖醛酸(果胶主链),其次是β-葡聚糖。
•神经递质调节:卵形拟杆菌可以消耗色氨酸和谷氨酸,合成γ-氨基丁酸(GABA)和谷氨酰胺。动物实验显示,卵形拟杆菌定植可增加肠道GABA浓度,可能通过肠-脑轴影响情绪和认知功能。
•免疫激活:是最能诱导肠道IgA产生的物种之一,通过IL-10和TGF-β信号促进Treg细胞分化,增强肠上皮屏障功能。其产生的吲哚-3-乙酸可激活树突状细胞的芳香烃受体(AhR),促进IL-22分泌。
B.ovatus调节免疫和肠道炎症
编辑
doi: 10.1016/j.ajpath.2021.01.009.
•代谢改善作用:改善胰岛素抵抗,降低血糖和血脂水平;通过调节胆汁酸代谢(增加猪去氧胆酸)减轻肾纤维化;在动脉粥样硬化模型中,通过抑制M1巨噬细胞极化减少炎症。
3
单形拟杆菌(B. uniformis)
单形拟杆菌(B. uniformis)则更多被认为是“代谢调节型拟杆菌”。
核心特点:
•代谢调节作用:与肥胖呈负相关,可降低血清胆固醇和甘油三酯水平,改善肝脂肪变性。研究显示,单形拟杆菌丰度与内脏脂肪面积(VFA)呈负相关,与胰岛素敏感性正相关。
•运动耐力提升:日本研究发现,长跑运动员肠道中单形拟杆菌丰度与3000米比赛成绩正相关。补充α-环糊精可增加单形拟杆菌丰度,提高耐力运动能力,其机制可能与促进肝脏糖异生有关。
•神经认知影响:儿童肠道中单形拟杆菌丰度与智商(FSIQ)评分正相关,尤其与语言能力相关。在长期封闭环境中,单形拟杆菌被鉴定为潜在的“精神抗生素”,通过产生短链脂肪酸和调节氨基酸代谢改善情绪。
•抗炎活性:可减轻DSS诱导的结肠炎,通过调节NF-κB和MAPK信号通路,减少促炎因子(TNF-α、IL-6)表达,增加抗炎因子IL-10水平。
4
脆弱拟杆菌(B. fragilis)
脆弱拟杆菌(B. fragilis)是功能高度分化的典型菌种,具有明显“双面性”:产肠毒素菌株(ETBF)与非产毒菌株(NTBF)作用迥异,既有通过多糖A发挥免疫调节的有益菌株,也有产生BFT毒素、与炎症性肠病及结直肠癌相关的致病菌株。
编辑
Sun F,et al.Food Res Int.2019
•非产肠毒素型脆弱拟杆菌对人体有益
因此,其“主导”并不简单等同于健康或异常,而更依赖于具体菌株层面的差异。共生不产肠毒素脆弱拟杆菌(NTBF)菌株已被证明属于典型条件性共生有益菌,对人体具有以下有益作用:
抗炎、改善结肠炎:脆弱拟杆菌(B. fragilis,NCTC 9343)产生的多糖A(PSA)具有显著抗炎作用,可通过诱导IL-10产生、扩增CD4+CD45Blow T细胞并抑制IL-17来调节免疫反应,从而预防并治疗结肠炎。
免疫调节:弱拟杆菌产生的两性离子PSA已被确定为一种免疫调节分子,在免疫系统成熟中发挥作用。T 辅助细胞1(TH1)和TH2细胞是效应CD4+ T细胞群的亚型。在之前的一项研究中,脆弱拟杆菌NCTC 9343或多糖A(PSA)都可以纠正无菌小鼠中的TH1/TH2细胞失衡并增强调节性T细胞(Treg)功能。
编辑
Sun F,et al.Food Res Int.2019
改善中枢神经系统疾病:脆弱拟杆菌对宿主具有间接影响,这归因于其独特的免疫调节功能。脆弱拟杆菌分泌的多糖A(PSA)是中枢神经系统脱髓鞘疾病的有效调节剂和抑制剂。
抑制气道炎症:研究表明,脆弱拟杆菌PSA可以通过诱导 CD4+ T 细胞的扩增和IL-10的产生来预防气道炎症和实验性哮喘。
促进抗癌:B.fragilis NCTC 9343 还有效促进抗癌免疫监视。口服脆弱拟杆菌或多糖可以逆转 CTLA-4 阻断抗癌疗法的无反应性。然而,许多患者不能很好地耐受多种副作用,特别是促炎作用。
•产肠毒素型脆弱拟杆菌则与多种人体疾病相关
产肠毒素脆弱拟杆菌(ETBF)菌株与多种涉及肠道和肠外感染的病症有关,包括炎症性肠病、菌血症、全身炎症和神经系统疾病。
编辑
Sun F,et al.Food Res Int.2019
我们将产肠毒素脆弱拟杆菌(ETBF)的主要危害概括为以下几个核心方面:
诱发结肠炎:
-BFT毒素裂解E-钙粘蛋白,破坏肠上皮屏障;
–激活Wnt、NF-κB、STAT3等炎症与增殖通路;
-诱导Th17免疫反应和IL-8等趋化因子释放,加重炎症;
-可导致持续性甚至致命性结肠炎(在易感宿主中)。
促进结直肠癌发生:
–增强肠上皮通透性并促进异常细胞增殖(如c-Myc上调);
-与慢性炎症协同推动肿瘤发生发展;
-与结直肠癌发生率呈显著相关
-可与pks⁺大肠杆菌协同,增加DNA损伤并加速癌变。
破坏肠道稳态:
-引发炎症级联反应,重塑肠道上皮至“疾病状态”;
-干扰正常菌群结构,导致生态失衡;
-在宿主易感条件下由共生转为致病。
诱导全身炎症及神经系统影响:
-产肠毒素脆弱拟杆菌脂多糖进入血液,引发系统性炎症;
-可能穿过血脑屏障,激活小胶质细胞炎症反应;
-与阿尔茨海默病等神经退行性疾病相关。
增强疾病易感性与进展风险:
-在FAP等高风险人群中显著富集;
–宿主易感性(免疫状态、菌群结构)决定其致病程度。
影响干预与治疗效果:
-具有较强生态位竞争能力,抑制有益菌(如NTBF)定植;
–降低益生菌干预效果,增加临床治疗复杂性。
5
粪便拟杆菌(B. stercoris)
粪便拟杆菌是人群检出率最高的拟杆菌种之一(超过97%),但与其他菌种不同,其在多种疾病状态中呈现出“富集趋势”,例如非酒精性脂肪性肝病、糖尿病肾病及克罗恩病等。
核心特点:
•疾病生物标志物:在非酒精性脂肪肝(NAFLD)患者中丰度显著升高,与肝内甘油三酯、谷丙转氨酶(ALT)水平正相关。研究显示,抗性淀粉干预可降低粪便拟杆菌丰度,改善肝功能指标。
编辑
doi: 10.1016/j.cmet.2023.08.002.
•肝细胞癌关联:早期肝细胞癌患者肠道中粪便拟杆菌丰度升高,晚期则显著降低,可能作为评估肝癌进展的无创生物标志物。
•潜在有益菌株:特定菌株(如B. stercoris KGMB02265)具有抗肥胖作用,可减少高脂饮食小鼠的脂肪沉积,改善葡萄糖耐量和血脂水平。
•抗病毒潜力:在低SARS-CoV-2传染性人群中丰度较高,可能通过产生短链脂肪酸增强免疫力,抑制病毒复制。
!
主要拟杆菌种的功能差异比较:
编辑
从整体来看,这些拟杆菌种之间的核心差异可以归纳为几个关键维度:
①代谢能力差异
拟杆菌种间最显著的差异体现在多糖利用谱上:
②代谢产物不同
不同拟杆菌产生的短链脂肪酸比例不同(如乙酸、丙酸为主),并且在胆汁酸代谢、氨基酸代谢等方面存在差异,这会进一步影响宿主代谢状态。
③免疫调节机制差异
不同拟杆菌种通过独特的机制调节宿主免疫:
④疾病关联差异
拟杆菌种与疾病的关联具有种特异性:
⑤环境适应性
主要体现在其应对外界干扰和维持自身稳定的能力上。这包括对抗生素作用的耐受程度、在炎症环境中持续生存与竞争的能力,以及与其他菌群之间的互作方式,如通过交叉喂养形成协同或竞争关系,从而共同影响其生态位的稳定性与扩张能力。
小编的话
因此,可以将不同人群中的拟杆菌主导模式理解为一种“功能等价但路径不同”的生态策略:它们都维持了肠道系统的基本功能(如多糖分解与能量供给),但具体由哪一个菌种承担这一角色,则取决于个体的长期饮食结构、代谢背景、免疫状态以及微生态历史。
这种差异也解释了一个重要现象:为什么在人群之间,即使都表现为“拟杆菌型肠型”,其健康状态却可能完全不同。关键不在于“有没有拟杆菌”,而在于“是哪一种拟杆菌在主导,以及它在执行什么功能”。
综上,不同人体中主导的拟杆菌种差异,本质上是肠道生态系统在长期演化与环境适应下形成的“个体化稳态”。理解这些差异,不仅有助于解释肠道菌群的稳定性与个体差异,也为精准营养与个体化微生态干预提供了重要基础。
肠道菌群是一个具有“稳态+恢复力”的复杂生态系统,而拟杆菌恰好位于这个系统的关键结构层。大多数干预只是”扰动”,而不是”重构”这个系统。
1
占据”重要生态位”
拟杆菌占据的不是普通位置,而是控制整个系统的“重要生态位”:
• 复杂多糖的初级降解(PUL系统);
• 黏液层的持续利用(宿主来源碳源);
• 与其他菌的交叉喂养起点。
拟杆菌对群落结构的这些”决定性作用”,使补充益生菌更像是在肠道生态中“引入新成员”,而拟杆菌则更接近于维持底层资源供给和代谢网络的“基础系统”(如复杂碳水的分解与利用)。外源菌株可以短期定植或产生作用,但通常难以替代拟杆菌在营养转化和生态稳定中的核心功能,因此其长期影响往往有限。
2
双重供能系统:不会被”断粮”
拟杆菌拥有两条能量获取途径,使其对饮食变化的“依赖度更低”:
外源供能:膳食纤维、多糖等饮食成分。
内源供能:肠道黏液等宿主自身成分。
这意味着,即使短期改变饮食或限制热量摄入,肠道中其他菌群可能出现较大波动,而拟杆菌通常仅发生相对丰度的调整,很少被完全替代或消失。这是因为拟杆菌既能利用外源饮食底物,也具备分解宿主来源物质(如黏液多糖)的能力,相当于同时依赖“外部供给”和“内源资源”,因此在生态中具有较强的稳定性与持续性。
3
菌群的”弹性恢复”
肠道菌群具有生态学中的”恢复力”特征,即受到扰动后能够恢复到原来状态的能力。
研究发现,饮食等因素可以引起肠道菌群的短期波动,但个体的整体菌群结构通常具有较强稳定性,并会在一段时间后恢复到原有状态。
这说明肠道菌群更像是一个具有“稳态恢复力”的动态系统,而非简单的线性变化过程。系统中存在一个相对稳定的“基线结构”,拟杆菌作为核心类群之一,往往处于这一稳态中。因此,补充益生菌可能带来暂时性改变,但一旦干预停止,菌群结构往往会在内在调控机制作用下回归原有状态。
4
多数干预没有触及”底层资源结构”
现在很多干预无效的原因是没有触及拟杆菌优势的根本基础:
益生菌:增加某些菌,但不改变食物结构;
短期饮食调整:改变输入,但不改变长期生态位;
抗生素:强干扰,但系统会重建原有结构。
拟杆菌的优势来自长期稳定的资源体系和与宿主的共生关系,它是结构性变量,而不是短期响应变量。
5
菌群-宿主共同稳定
拟杆菌的稳定不仅是菌群内部稳定,而是“菌群-宿主共同稳定”系统:宿主免疫系统”允许它存在”,它反过来调节免疫和代谢。
这意味着想改变拟杆菌,不只是改菌,而是要改”宿主+菌群”这个整体系统,这使得改变非常困难。
小编总结
拟杆菌之所以容易成为主导菌群且难以被干预改变,主要源于其“代谢广谱 + 生态位稳固 + 系统稳态”三重优势:一方面它拥有丰富的多糖利用基因簇,既能分解多种膳食纤维和抗性淀粉,也能在外源营养不足时转而利用宿主分泌的黏蛋白作为能量来源,因此不易被“饿掉”;另一方面其对肠道环境具有很强适应性(耐胆汁、适应高脂高蛋白饮食),并能贴附肠黏膜占据底层生态位,使其他菌群难以替代;同时肠道菌群整体具有显著的稳态和回弹能力,导致短期饮食改变或单一益生菌补充往往难以撼动其主导地位。
因此,干预的关键不在“添加某种菌”,而在于系统性重塑生态结构:从长期看,应持续3–6个月以上提高膳食纤维的种类与来源多样性(蔬菜、豆类、全谷物、菌菇等),增加抗性淀粉摄入,降低高脂及动物蛋白比例,从而为丁酸菌、双歧杆菌等竞争菌创造优势生态位;从短期看,可结合益生元(如菊粉、FOS)、多酚类食物(茶、可可、浆果)以及阶段性高纤维低脂饮食作为“扰动手段”,帮助打破原有稳态,但必须与长期饮食结构配合才能维持效果。
总体而言,科学上更现实的目标并非清除拟杆菌,而是降低其过度主导、提升菌群多样性与功能稳定性;目前最可靠且可持续的策略仍是以长期饮食结构调整为核心,辅以针对性短期干预,逐步实现肠道生态的再平衡。
主要参考文献:
Johnson EL, Heaver SL, Walters WA, Ley RE. Microbiome and metabolic disease: revisiting the bacterial phylum Bacteroidetes. J Mol Med (Berl). 2017 Jan;95(1):1-8.
Shin JH, Tillotson G, MacKenzie TN, Warren CA, Wexler HM, Goldstein EJC. Bacteroides and related species: The keystone taxa of the human gut microbiota. Anaerobe. 2024 Feb;85:102819.
Suzuki TA, Worobey M. Geographical variation of human gut microbial composition. Biol Lett. 2014 Feb 12;10(2):20131037.
Nomura K, Ishikawa D, Okahara K, Ito S, Haga K, Takahashi M, Arakawa A, Shibuya T, Osada T, Kuwahara-Arai K, Kirikae T, Nagahara A. Bacteroidetes Species Are Correlated with Disease Activity in Ulcerative Colitis. J Clin Med. 2021 Apr 17;10(8):1749.
Koliada A, Syzenko G, Moseiko V, Budovska L, Puchkov K, Perederiy V, Gavalko Y, Dorofeyev A, Romanenko M, Tkach S, Sineok L, Lushchak O, Vaiserman A. Association between body mass index and Firmicutes/Bacteroidetes ratio in an adult Ukrainian population. BMC Microbiol. 2017 May 22;17(1):120.
Davenport ER, Mizrahi-Man O, Michelini K, Barreiro LB, Ober C, Gilad Y. Seasonal variation in human gut microbiome composition. PLoS One. 2014 Mar 11;9(3):e90731.
Wexler AG, Goodman AL. An insider’s perspective: Bacteroides as a window into the microbiome. Nat Microbiol. 2017 Apr 25;2:17026.
Magne F, Gotteland M, Gauthier L, Zazueta A, Pesoa S, Navarrete P, Balamurugan R. The Firmicutes/Bacteroidetes Ratio: A Relevant Marker of Gut Dysbiosis in Obese Patients? Nutrients. 2020 May 19;12(5):1474.