-

 国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
 二级病原微生物安全实验室
 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
- 联系电话:+13336028502
- +400-161-1580
- service@guheinfo.com
国家认可委 CNAS L23010 认可项目:微生物宏基因组 | 16S rRNA扩增子
二级病原微生物安全实验室 国家高新企业 | ISO9001认证 | 肠道健康精准检测高新技术研发中心 | 专精特新企业
谷禾健康
在谷禾大量人群肠道菌群测序数据中,一个反复出现的现象逐渐引起关注:拟杆菌往往占据主导地位。更耐人寻味的是,即便在饮食剧烈改变、疾病发生,甚至经过益生菌等干预后,肠道生态发生明显波动,这一“核心类群”却依然保持稳定,难以被真正取代。这不禁让人思考:拟杆菌为何具有如此强的“稳态优势”,它在肠道生态中究竟扮演着怎样的角色?
肠道微生态是一个长期维持稳态的复杂生态系统,而拟杆菌作为其中的关键类群,具有较强的环境适应能力、代谢灵活性和长期定植能力,总是在群落中占据重要地位。
拟杆菌之所以常常占主导,不只是因为它多,还因为它同时掌握了“食物从哪来、怎么分给其他肠道菌群、还要怎么和身体打交道”这三件最关键的事。
1
极强的“吃饭能力”—碳源入口
拟杆菌最突出的能力是分解复杂多糖,如膳食纤维、植物细胞壁和黏液等。
• 具备丰富的多糖利用位点,可代谢多种碳水化合物
拟杆菌拥有大量多糖利用位点(PULs),每一个 PUL相当于一套“识别+运输+降解”复杂多糖的完整系统。可以针对不同来源碳水(植物、藻类、宿主黏液)进行定制化利用。
研究发现,拟杆菌是肠道中最重要的复杂碳水降解者之一,参与宿主能量获取,并影响代谢效率。
通俗来说,其他菌较为挑食,而拟杆菌几乎能利用各种复杂底物,兼具分解与供能功能,因此在典型的现代高碳水、结构复杂的饮食条件下更具优势。
2
是“代谢网络的重要起点”
拟杆菌在维持肠道微生态稳态中具有”结构性作用”,不仅自身代谢,还支撑其他菌生长。
• 拟杆菌能够支持肠道内其他菌生长
拟杆菌是”交叉喂养(cross-feeding)网络的起点”。它分解复杂多糖后释放出寡糖、单糖和代谢中间产物(如乙酸、丙酸),这些物质可以被其他菌(如厚壁菌门)进一步利用。
因此,拟杆菌不仅是一个物种,更像是一种”生态功能层”,通过“喂养”整个菌群的一大部分成员来维持其核心地位。
3
能利用两种资源:外源饮食+内源宿主
拟杆菌具有利用宿主来源底物的能力,是其长期定植的重要原因。大多数菌只能依赖外源饮食,而拟杆菌具有独特的“双资源通道”:
• 外源资源:膳食纤维、多糖等饮食成分。
• 内源资源:肠道黏液糖蛋白等宿主自身成分。
通俗地说:它不是依赖你吃的食物活,而是”部分依赖你身体本身”活。这意味着:你吃得好→它活得好;你不吃(节食/低碳)→它还能活。
4
深度参与”宿主调控系统”
拟杆菌不仅是肠道中的”乘客”,更像”调控者”,深度参与宿主多个生理系统的调节:
• 免疫系统训练:调节Treg细胞,影响炎症水平。
• 肠道屏障维护:促进黏液层动态平衡。
• 代谢信号调控:产生SCFAs(尤其丙酸),影响肝脏糖脂代谢。
拟杆菌被认为在免疫调节和代谢稳态中具有核心作用。
拟杆菌是成人肠道菌群的核心类群之一,经过长期筛选而稳定存在。其兼具对宿主有益(代谢与免疫)、可长期定植以及耐受环境波动(厌氧环境适应强、能耐受胆汁、能黏附肠黏膜)等特征,因此可视为被宿主选择保留的菌群。
5
对”现代饮食结构”具有额外优势
• 现代饮食结构更利于拟杆菌而不是普雷沃氏菌
拟杆菌在很大程度上可以被视为“现代饮食的受益者”。在以高蛋白、高脂以及精加工碳水为特征的现代饮食结构中,食物残渣不仅来源多样,而且分子结构复杂,这类底物更符合拟杆菌的代谢特点和生存需求,使其更容易占据优势地位。
相较之下,这种饮食环境则不利于一些代谢底物较为单一、依赖特定碳源的专一型菌群(如Prevotella)的生长与维持。
并且,拟杆菌与普雷沃氏菌之间还存在相互拮抗的关系,二者属于彼此对立、相互制约的菌属。
小编的话
拟杆菌之所以能够成为主导菌群,是因为它在肠道生态中同时占据并调控了多个关键层面。首先在上游,它掌握了复杂碳水进入代谢体系的“入口”;在中游,它参与并影响菌群整体的能量流动与分配;在下游,它进一步作用于宿主的代谢过程和免疫调控。
除此之外,拟杆菌还能够利用宿主来源的资源,并具备良好的环境适应能力,从而在波动条件下保持稳定。这些多层功能的协同作用,使其成为肠道菌群的重要主导类型。
在人体肠道微生态中,拟杆菌虽被视为关键类群,但其在不同人群中的丰度却呈现出显著差异,甚至可达“群体特征”的程度,这种差异可以从下面几个层面理解。
人类肠道微生物在门级和属级的全球分布与丰度
doi: 10.1038/nmicrobiol.2017.26.
1
饮食差异(最重要因素)
饮食是微生物组多样性的主要驱动力。最近的遗传学研究强调了宿主基因型在确定肠道微生物组中特定类群的相对丰度方面的重要性,但很少有拟杆菌受到宿主遗传学的影响(即是可遗传的)。这意味着,对于该门的大多数成员来说,环境因素(包括饮食)决定了它们在宿主中的相对丰度。
编辑
• 西式饮食人群拟杆菌比例更高
饮食研究报告了粪便中拟杆菌的相对丰度与富含动物性食物(高脂肪、高蛋白)和低纤维饮食之间的关联。粪便高拟草菌丰度与富含蛋白质和动物脂肪的饮食呈正相关,与纤维摄入负相关。
•高蛋白/高脂饮食(西方饮食)→拟杆菌比例 ↑
•高纤维/高多样植物饮食→Prevotella比例 ↑
不过,从长期来看,较高纤维摄入也可能与拟杆菌的稳定优势相关,提示其对不同饮食结构具有一定适应性。因此,最明确的结论是:短期内,高脂肪、高蛋白、低纤维的动物性饮食最直接促进拟杆菌升高,而长期影响则更为复杂。
• 营养过剩可能会减少拟杆菌
拟杆菌被发现对过度营养较为敏感。研究中发现,将肥胖与瘦个体分别置于体重维持或过量饮食(2400与3400千卡/天)下,瘦者在过量喂食后粪便中拟杆菌减少约20%,同时能量吸收增加约150千卡;类似结果也见于芬兰单卵双胞胎,过量能量摄入与拟杆菌减少相关。
相反,胃旁路手术后拟杆菌增加,可能与能量负荷降低而非体重变化有关。这些结果表明,营养状态可调节拟杆菌丰度并影响能量获取效率,这也与早期在肥胖模型中观察到的低拟杆菌水平以及节食时其升高的现象一致。
注:有研究发现健康成年人中,较高的饮食质量评分与拟杆菌丰度呈负相关。
• 营养不良也可能影响拟杆菌丰度
研究显示营养不良对拟杆菌丰度的影响并不一致。在孟加拉儿童中,营养不良通常伴随拟杆菌减少,但不同成员变化不同,例如Prevotella在健康儿童中更丰富,而部分拟杆菌在营养不良者中反而增加。
另一研究也发现,营养不良儿童中B.fragilis、B.galacturonicus和P. copri等菌减少。拟杆菌的缺乏可能通过降低多糖发酵和短链脂肪酸生成能力而加重营养不良。
动物研究提供了更可控的证据:小鼠禁食1–3天时,拟杆菌门比例显著升高。但不同分类单元对进食模式反应不一,例如限制进食时间的大鼠中,Prevotella增加而拟杆菌门总体下降,反映出该类群内部存在复杂而差异化的动态变化。
• 拟杆菌丰度还可能随昼夜和季节变化
研究表明肠道微生物组会随饮食的昼夜节律呈现相应波动。小鼠禁食期间拟杆菌在白天达到峰值,而夜间进食时下降;但不同研究结果并不一致。在缺失宿主生物钟的小鼠中观察到,无论进食安排在昼或夜,菌群丰度均在12小时内达到峰值。
在人类中,副杆菌属的最低丰度通常出现在午夜。这些昼夜变化与进食模式之间的关系仍有待进一步阐明。
在饮食结构基本稳定、但夏季新鲜农产品增加的群体中,拟杆菌比例由冬季的11%升至夏季的30%,可能与更复杂的碳水化合物摄入有关。
门级分类单元的丰度因季节而异
编辑
doi: 10.1371/journal.pone.0090731.
• 吸烟和饮酒会增加拟杆菌丰度
随着酒精摄入增加,拟杆菌的相对比例往往上升;与此同时,这种能量来源却与厚壁菌门的丰度呈负相关,即其水平可能随之下降。
吸烟人群的肠道微生物组成也表现出类似的变化趋势:拟杆菌的相对丰度增加,而厚壁菌门以及变形杆菌的水平则相应减少。
2
地理与气候因素
• 低纬度地区拟杆菌丰度较高
研究表明,地理纬度与拟杆菌的相对比例之间存在一定相关性。一项涵盖1020名健康个体、跨越23个不同人群的研究显示,拟杆菌的相对丰度随纬度升高而显著下降,与之相对的厚壁菌门则呈上升趋势,这种分布格局甚至被认为与能量获取策略的生态适应有关。
同时,各地人群的能量需求也可能不同,如高纬度地区更依赖脂肪供能,而低纬度地区则更多依赖碳水化合物,这些因素共同影响了拟杆菌的丰度分布。
与此同时,多组学研究表明,肠道菌群虽在个体间高度独特,但在家庭或生活方式相似的人群中具有一定相似性,并在不同地理与饮食背景下显著分化。
3
个体早期定植(”起跑线不同”)
肠道菌群有很强的”路径依赖”,早期生活事件会决定最初的”菌群底盘“:
• 出生方式(顺产vs剖腹产):顺产婴儿在通过产道时会接触母体阴道和肠道菌群,更容易早期定植拟杆菌。
• 婴儿喂养(母乳vs配方奶):母乳中的低聚糖等成分有助于促进特定肠道菌群的建立,包括拟杆菌。
• 抗生素暴露:抗生素暴露通常会显著扰动拟杆菌的丰度,但具体影响取决于抗生素类型、剂量和使用时间。
而拟杆菌一旦在早期建立优势,很容易长期维持这一优势地位。
4
宿主基因与免疫系统
个体间的基因差异导致:
• 黏液成分不同;
• 免疫识别差异;
• 胆汁酸代谢差异。
这些因素都会影响”哪类菌更容易被允许长期存在”,从而导致拟杆菌比例的个体差异。
5
生活方式(被严重低估的因素)
包括压力、睡眠、运动和药物使用(特别是抗生素、质子泵抑制剂)等生活方式因素都会影响拟杆菌比例。研究指出,很多菌群研究结果的差异来自”未控制生活方式变量“。
• 压力
慢性心理或生理压力可通过“肠-脑轴”调节肠道菌群:一方面,皮质醇等压力激素会改变肠道通透性与免疫反应并增加炎症;另一方面,还会影响肠道蠕动与分泌功能。这些变化不利于厌氧菌群稳定,可能导致拟杆菌丰度下降或波动加剧,并促进部分机会致病菌扩张。
• 睡眠
睡眠节律紊乱会干扰宿主的昼夜节律,进而影响肠道微生物的周期性变化。拟杆菌具有一定的昼夜波动特征,睡眠不足或昼夜颠倒可打乱其增殖节律,导致丰度下降或节律减弱。同时,睡眠不足还与炎症升高和代谢紊乱相关,从而间接影响其生态位。
• 运动
适度运动可提升肠道菌群多样性并改善代谢环境(如促进短链脂肪酸代谢),使拟杆菌丰度更稳定甚至增加;而过度训练可能引发应激反应和肠道通透性升高,反而不利于拟杆菌,呈现双向效应。
• 药物使用
抗生素是影响最直接且显著的因素之一。广谱抗生素会降低肠道菌群多样性,并明显抑制甚至短期清除拟杆菌;其恢复速度和程度因人而异,可能导致长期丰度变化或群落重塑。
质子泵抑制剂(PPI)通过抑制胃酸、提高胃内pH,削弱上游屏障,使更多口腔或外源细菌进入肠道,从而改变微生态结构,通常降低拟杆菌的相对优势,并增加其他菌群比例。
6
体质指数(BMI)
已经有不少研究分析了体质指数(BMI)与肠道微生物组成之间的关系,重点分析厚壁菌门(Firmicutes)与拟杆菌门(Bacteroidetes)的比例(F/B比值)。
• 肥胖人群中的拟杆菌门可能比例减少
不同BMI类别中主要微生物的相对丰度
编辑
doi: 10.1186/s12866-017-1027-1.
结果显示,随着BMI升高,厚壁菌门丰度增加、拟杆菌门减少,导致F/B比值显著升高,并且该比值与肥胖呈显著正相关,即使在控制年龄、性别、吸烟和体力活动等因素后仍成立。但不同人群中结果存在差异,可能与饮食和环境因素有关。
7
肠道疾病(溃疡性结肠炎)
编辑
肠道疾病,尤其是溃疡性结肠炎,与拟杆菌的“降低和多样性丧失”密切相关。这种变化不仅反映疾病状态,还可能参与疾病发生发展。
• 溃疡性结肠炎患者中拟杆菌丰度降低
在溃疡性结肠炎(UC)患者中,拟杆菌整体多样性和丰度明显降低。研究显示,与健康对照相比,UC患者中至少6种拟杆菌显著减少,同时有12种拟杆菌与疾病活动度指标(如炎症水平、临床评分)显著相关。这说明拟杆菌的减少不仅是“伴随现象”,还与疾病严重程度直接相关。
12种关键拟杆菌与UC相关基因表达热图
编辑
doi: 10.3390/jcm10081749.
从现有研究与人群数据来看,在成人肠道中较为常见的主导拟杆菌种主要包括:多形拟杆菌(Bacteroides thetaiotaomicron)、卵形拟杆菌(Bacteroides ovatus)、单形拟杆菌(Bacteroides uniformis)、脆弱拟杆菌(Bacteroides fragilis)以及粪便拟杆菌(Bacteroides stercoris)。
这些菌种在不同个体中可以形成“优势替代”关系,即在总体拟杆菌占比相似的情况下,具体主导菌种却截然不同。它们在功能上既有重叠又各具特色。
1
多形拟杆菌(B. thetaiotaomicron)
首先,多形拟杆菌(B. thetaiotaomicron)是多糖利用能力突出的代表,以强大的多糖降解能力和生态适应性著称。
其具有以下核心特点:
•强大的多糖利用能力:基因组编码超过226种糖苷水解酶和15种多糖裂解酶,可降解超过20种不同的植物多糖,包括木聚糖、果胶、葡甘露聚糖等。其163个SusC/SusD同源物(外膜多糖结合蛋白)构成了复杂的多糖识别系统。
•宿主多糖利用:当膳食多糖缺乏时,多形拟杆菌可转向利用宿主黏液聚糖,通过上调己糖胺酶、α-岩藻糖苷酶和唾液酸酶等基因,降解肠道黏液层中的糖蛋白。这种能力使其在营养匮乏时仍能维持生存。
•肠道发育调控:多形拟杆菌可刺激肠道血管生成(通过血管生成素-3)、促进上皮细胞成熟(上调SGLT-1等营养吸收相关基因),并增强肠道屏障功能(诱导紧密连接蛋白表达)。
•免疫调节:通过PPARγ依赖性通路抑制促炎基因(如NF-κB)的转录,减少肠道炎症反应。其外膜囊泡可递送免疫调节分子,促进调节性T细胞(Treg)分化。
注:但在炎症环境中,其代谢产物也可能被机会致病菌利用,体现出典型的“双刃剑”特征。
2
卵形拟杆菌(B. ovatus)
其次,卵形拟杆菌(B. ovatus)同样具备强大的多糖降解能力,特点在于广谱底物利用,并具有潜在的神经递质调节作用。
其具有以下核心特点:
•多糖代谢专家:可降解超过30种植物多糖,包括果胶、菊粉、阿拉伯木聚糖等,对多糖代谢具有优先级,优先利用均聚半乳糖醛酸(果胶主链),其次是β-葡聚糖。
•神经递质调节:卵形拟杆菌可以消耗色氨酸和谷氨酸,合成γ-氨基丁酸(GABA)和谷氨酰胺。动物实验显示,卵形拟杆菌定植可增加肠道GABA浓度,可能通过肠-脑轴影响情绪和认知功能。
•免疫激活:是最能诱导肠道IgA产生的物种之一,通过IL-10和TGF-β信号促进Treg细胞分化,增强肠上皮屏障功能。其产生的吲哚-3-乙酸可激活树突状细胞的芳香烃受体(AhR),促进IL-22分泌。
B.ovatus调节免疫和肠道炎症
编辑
doi: 10.1016/j.ajpath.2021.01.009.
•代谢改善作用:改善胰岛素抵抗,降低血糖和血脂水平;通过调节胆汁酸代谢(增加猪去氧胆酸)减轻肾纤维化;在动脉粥样硬化模型中,通过抑制M1巨噬细胞极化减少炎症。
3
单形拟杆菌(B. uniformis)
单形拟杆菌(B. uniformis)则更多被认为是“代谢调节型拟杆菌”。
核心特点:
•代谢调节作用:与肥胖呈负相关,可降低血清胆固醇和甘油三酯水平,改善肝脂肪变性。研究显示,单形拟杆菌丰度与内脏脂肪面积(VFA)呈负相关,与胰岛素敏感性正相关。
•运动耐力提升:日本研究发现,长跑运动员肠道中单形拟杆菌丰度与3000米比赛成绩正相关。补充α-环糊精可增加单形拟杆菌丰度,提高耐力运动能力,其机制可能与促进肝脏糖异生有关。
•神经认知影响:儿童肠道中单形拟杆菌丰度与智商(FSIQ)评分正相关,尤其与语言能力相关。在长期封闭环境中,单形拟杆菌被鉴定为潜在的“精神抗生素”,通过产生短链脂肪酸和调节氨基酸代谢改善情绪。
•抗炎活性:可减轻DSS诱导的结肠炎,通过调节NF-κB和MAPK信号通路,减少促炎因子(TNF-α、IL-6)表达,增加抗炎因子IL-10水平。
4
脆弱拟杆菌(B. fragilis)
脆弱拟杆菌(B. fragilis)是功能高度分化的典型菌种,具有明显“双面性”:产肠毒素菌株(ETBF)与非产毒菌株(NTBF)作用迥异,既有通过多糖A发挥免疫调节的有益菌株,也有产生BFT毒素、与炎症性肠病及结直肠癌相关的致病菌株。
编辑
Sun F,et al.Food Res Int.2019
•非产肠毒素型脆弱拟杆菌对人体有益
因此,其“主导”并不简单等同于健康或异常,而更依赖于具体菌株层面的差异。共生不产肠毒素脆弱拟杆菌(NTBF)菌株已被证明属于典型条件性共生有益菌,对人体具有以下有益作用:
抗炎、改善结肠炎:脆弱拟杆菌(B. fragilis,NCTC 9343)产生的多糖A(PSA)具有显著抗炎作用,可通过诱导IL-10产生、扩增CD4+CD45Blow T细胞并抑制IL-17来调节免疫反应,从而预防并治疗结肠炎。
免疫调节:弱拟杆菌产生的两性离子PSA已被确定为一种免疫调节分子,在免疫系统成熟中发挥作用。T 辅助细胞1(TH1)和TH2细胞是效应CD4+ T细胞群的亚型。在之前的一项研究中,脆弱拟杆菌NCTC 9343或多糖A(PSA)都可以纠正无菌小鼠中的TH1/TH2细胞失衡并增强调节性T细胞(Treg)功能。
编辑
Sun F,et al.Food Res Int.2019
改善中枢神经系统疾病:脆弱拟杆菌对宿主具有间接影响,这归因于其独特的免疫调节功能。脆弱拟杆菌分泌的多糖A(PSA)是中枢神经系统脱髓鞘疾病的有效调节剂和抑制剂。
抑制气道炎症:研究表明,脆弱拟杆菌PSA可以通过诱导 CD4+ T 细胞的扩增和IL-10的产生来预防气道炎症和实验性哮喘。
促进抗癌:B.fragilis NCTC 9343 还有效促进抗癌免疫监视。口服脆弱拟杆菌或多糖可以逆转 CTLA-4 阻断抗癌疗法的无反应性。然而,许多患者不能很好地耐受多种副作用,特别是促炎作用。
•产肠毒素型脆弱拟杆菌则与多种人体疾病相关
产肠毒素脆弱拟杆菌(ETBF)菌株与多种涉及肠道和肠外感染的病症有关,包括炎症性肠病、菌血症、全身炎症和神经系统疾病。
编辑
Sun F,et al.Food Res Int.2019
我们将产肠毒素脆弱拟杆菌(ETBF)的主要危害概括为以下几个核心方面:
诱发结肠炎:
-BFT毒素裂解E-钙粘蛋白,破坏肠上皮屏障;
–激活Wnt、NF-κB、STAT3等炎症与增殖通路;
-诱导Th17免疫反应和IL-8等趋化因子释放,加重炎症;
-可导致持续性甚至致命性结肠炎(在易感宿主中)。
促进结直肠癌发生:
–增强肠上皮通透性并促进异常细胞增殖(如c-Myc上调);
-与慢性炎症协同推动肿瘤发生发展;
-与结直肠癌发生率呈显著相关
-可与pks⁺大肠杆菌协同,增加DNA损伤并加速癌变。
破坏肠道稳态:
-引发炎症级联反应,重塑肠道上皮至“疾病状态”;
-干扰正常菌群结构,导致生态失衡;
-在宿主易感条件下由共生转为致病。
诱导全身炎症及神经系统影响:
-产肠毒素脆弱拟杆菌脂多糖进入血液,引发系统性炎症;
-可能穿过血脑屏障,激活小胶质细胞炎症反应;
-与阿尔茨海默病等神经退行性疾病相关。
增强疾病易感性与进展风险:
-在FAP等高风险人群中显著富集;
–宿主易感性(免疫状态、菌群结构)决定其致病程度。
影响干预与治疗效果:
-具有较强生态位竞争能力,抑制有益菌(如NTBF)定植;
–降低益生菌干预效果,增加临床治疗复杂性。
5
粪便拟杆菌(B. stercoris)
粪便拟杆菌是人群检出率最高的拟杆菌种之一(超过97%),但与其他菌种不同,其在多种疾病状态中呈现出“富集趋势”,例如非酒精性脂肪性肝病、糖尿病肾病及克罗恩病等。
核心特点:
•疾病生物标志物:在非酒精性脂肪肝(NAFLD)患者中丰度显著升高,与肝内甘油三酯、谷丙转氨酶(ALT)水平正相关。研究显示,抗性淀粉干预可降低粪便拟杆菌丰度,改善肝功能指标。
编辑
doi: 10.1016/j.cmet.2023.08.002.
•肝细胞癌关联:早期肝细胞癌患者肠道中粪便拟杆菌丰度升高,晚期则显著降低,可能作为评估肝癌进展的无创生物标志物。
•潜在有益菌株:特定菌株(如B. stercoris KGMB02265)具有抗肥胖作用,可减少高脂饮食小鼠的脂肪沉积,改善葡萄糖耐量和血脂水平。
•抗病毒潜力:在低SARS-CoV-2传染性人群中丰度较高,可能通过产生短链脂肪酸增强免疫力,抑制病毒复制。
!
主要拟杆菌种的功能差异比较:
编辑
从整体来看,这些拟杆菌种之间的核心差异可以归纳为几个关键维度:
①代谢能力差异
拟杆菌种间最显著的差异体现在多糖利用谱上:
②代谢产物不同
不同拟杆菌产生的短链脂肪酸比例不同(如乙酸、丙酸为主),并且在胆汁酸代谢、氨基酸代谢等方面存在差异,这会进一步影响宿主代谢状态。
③免疫调节机制差异
不同拟杆菌种通过独特的机制调节宿主免疫:
④疾病关联差异
拟杆菌种与疾病的关联具有种特异性:
⑤环境适应性
主要体现在其应对外界干扰和维持自身稳定的能力上。这包括对抗生素作用的耐受程度、在炎症环境中持续生存与竞争的能力,以及与其他菌群之间的互作方式,如通过交叉喂养形成协同或竞争关系,从而共同影响其生态位的稳定性与扩张能力。
小编的话
因此,可以将不同人群中的拟杆菌主导模式理解为一种“功能等价但路径不同”的生态策略:它们都维持了肠道系统的基本功能(如多糖分解与能量供给),但具体由哪一个菌种承担这一角色,则取决于个体的长期饮食结构、代谢背景、免疫状态以及微生态历史。
这种差异也解释了一个重要现象:为什么在人群之间,即使都表现为“拟杆菌型肠型”,其健康状态却可能完全不同。关键不在于“有没有拟杆菌”,而在于“是哪一种拟杆菌在主导,以及它在执行什么功能”。
综上,不同人体中主导的拟杆菌种差异,本质上是肠道生态系统在长期演化与环境适应下形成的“个体化稳态”。理解这些差异,不仅有助于解释肠道菌群的稳定性与个体差异,也为精准营养与个体化微生态干预提供了重要基础。
肠道菌群是一个具有“稳态+恢复力”的复杂生态系统,而拟杆菌恰好位于这个系统的关键结构层。大多数干预只是”扰动”,而不是”重构”这个系统。
1
占据”重要生态位”
拟杆菌占据的不是普通位置,而是控制整个系统的“重要生态位”:
• 复杂多糖的初级降解(PUL系统);
• 黏液层的持续利用(宿主来源碳源);
• 与其他菌的交叉喂养起点。
拟杆菌对群落结构的这些”决定性作用”,使补充益生菌更像是在肠道生态中“引入新成员”,而拟杆菌则更接近于维持底层资源供给和代谢网络的“基础系统”(如复杂碳水的分解与利用)。外源菌株可以短期定植或产生作用,但通常难以替代拟杆菌在营养转化和生态稳定中的核心功能,因此其长期影响往往有限。
2
双重供能系统:不会被”断粮”
拟杆菌拥有两条能量获取途径,使其对饮食变化的“依赖度更低”:
外源供能:膳食纤维、多糖等饮食成分。
内源供能:肠道黏液等宿主自身成分。
这意味着,即使短期改变饮食或限制热量摄入,肠道中其他菌群可能出现较大波动,而拟杆菌通常仅发生相对丰度的调整,很少被完全替代或消失。这是因为拟杆菌既能利用外源饮食底物,也具备分解宿主来源物质(如黏液多糖)的能力,相当于同时依赖“外部供给”和“内源资源”,因此在生态中具有较强的稳定性与持续性。
3
菌群的”弹性恢复”
肠道菌群具有生态学中的”恢复力”特征,即受到扰动后能够恢复到原来状态的能力。
研究发现,饮食等因素可以引起肠道菌群的短期波动,但个体的整体菌群结构通常具有较强稳定性,并会在一段时间后恢复到原有状态。
这说明肠道菌群更像是一个具有“稳态恢复力”的动态系统,而非简单的线性变化过程。系统中存在一个相对稳定的“基线结构”,拟杆菌作为核心类群之一,往往处于这一稳态中。因此,补充益生菌可能带来暂时性改变,但一旦干预停止,菌群结构往往会在内在调控机制作用下回归原有状态。
4
多数干预没有触及”底层资源结构”
现在很多干预无效的原因是没有触及拟杆菌优势的根本基础:
益生菌:增加某些菌,但不改变食物结构;
短期饮食调整:改变输入,但不改变长期生态位;
抗生素:强干扰,但系统会重建原有结构。
拟杆菌的优势来自长期稳定的资源体系和与宿主的共生关系,它是结构性变量,而不是短期响应变量。
5
菌群-宿主共同稳定
拟杆菌的稳定不仅是菌群内部稳定,而是“菌群-宿主共同稳定”系统:宿主免疫系统”允许它存在”,它反过来调节免疫和代谢。
这意味着想改变拟杆菌,不只是改菌,而是要改”宿主+菌群”这个整体系统,这使得改变非常困难。
小编总结
拟杆菌之所以容易成为主导菌群且难以被干预改变,主要源于其“代谢广谱 + 生态位稳固 + 系统稳态”三重优势:一方面它拥有丰富的多糖利用基因簇,既能分解多种膳食纤维和抗性淀粉,也能在外源营养不足时转而利用宿主分泌的黏蛋白作为能量来源,因此不易被“饿掉”;另一方面其对肠道环境具有很强适应性(耐胆汁、适应高脂高蛋白饮食),并能贴附肠黏膜占据底层生态位,使其他菌群难以替代;同时肠道菌群整体具有显著的稳态和回弹能力,导致短期饮食改变或单一益生菌补充往往难以撼动其主导地位。
因此,干预的关键不在“添加某种菌”,而在于系统性重塑生态结构:从长期看,应持续3–6个月以上提高膳食纤维的种类与来源多样性(蔬菜、豆类、全谷物、菌菇等),增加抗性淀粉摄入,降低高脂及动物蛋白比例,从而为丁酸菌、双歧杆菌等竞争菌创造优势生态位;从短期看,可结合益生元(如菊粉、FOS)、多酚类食物(茶、可可、浆果)以及阶段性高纤维低脂饮食作为“扰动手段”,帮助打破原有稳态,但必须与长期饮食结构配合才能维持效果。
总体而言,科学上更现实的目标并非清除拟杆菌,而是降低其过度主导、提升菌群多样性与功能稳定性;目前最可靠且可持续的策略仍是以长期饮食结构调整为核心,辅以针对性短期干预,逐步实现肠道生态的再平衡。
主要参考文献:
Johnson EL, Heaver SL, Walters WA, Ley RE. Microbiome and metabolic disease: revisiting the bacterial phylum Bacteroidetes. J Mol Med (Berl). 2017 Jan;95(1):1-8.
Shin JH, Tillotson G, MacKenzie TN, Warren CA, Wexler HM, Goldstein EJC. Bacteroides and related species: The keystone taxa of the human gut microbiota. Anaerobe. 2024 Feb;85:102819.
Suzuki TA, Worobey M. Geographical variation of human gut microbial composition. Biol Lett. 2014 Feb 12;10(2):20131037.
Nomura K, Ishikawa D, Okahara K, Ito S, Haga K, Takahashi M, Arakawa A, Shibuya T, Osada T, Kuwahara-Arai K, Kirikae T, Nagahara A. Bacteroidetes Species Are Correlated with Disease Activity in Ulcerative Colitis. J Clin Med. 2021 Apr 17;10(8):1749.
Koliada A, Syzenko G, Moseiko V, Budovska L, Puchkov K, Perederiy V, Gavalko Y, Dorofeyev A, Romanenko M, Tkach S, Sineok L, Lushchak O, Vaiserman A. Association between body mass index and Firmicutes/Bacteroidetes ratio in an adult Ukrainian population. BMC Microbiol. 2017 May 22;17(1):120.
Davenport ER, Mizrahi-Man O, Michelini K, Barreiro LB, Ober C, Gilad Y. Seasonal variation in human gut microbiome composition. PLoS One. 2014 Mar 11;9(3):e90731.
Wexler AG, Goodman AL. An insider’s perspective: Bacteroides as a window into the microbiome. Nat Microbiol. 2017 Apr 25;2:17026.
Magne F, Gotteland M, Gauthier L, Zazueta A, Pesoa S, Navarrete P, Balamurugan R. The Firmicutes/Bacteroidetes Ratio: A Relevant Marker of Gut Dysbiosis in Obese Patients? Nutrients. 2020 May 19;12(5):1474.
谷禾健康
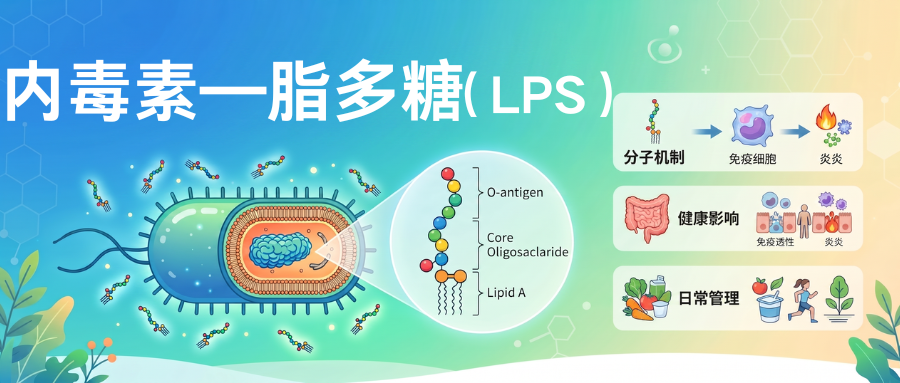
你是否有过这样的经历:明明没有剧烈运动,却总是感到莫名的疲惫;或者明明控制了饮食,体重却依然居高不下,体检报告上的血糖、血脂指标也总是亮起红灯?我们习惯将这些问题归咎于“吃多了”或“动少了”,却往往忽视了一个潜伏在身体内部、肉眼不可见的“隐形杀手”——脂多糖(LPS)。
脂多糖并非外来入侵的毒素,而是我们肠道中数以万亿计细菌的细胞壁成分。在正常情况下,它安分守己地待在肠道内,甚至对免疫系统有益。然而,当肠道屏障受损或饮食结构失衡时,这些本不该进入血液的分子便会“越狱”,引发一场悄无声息却破坏力巨大的全身性慢性炎症。
这种持续存在的低水平炎症,被认为是代谢综合征、2型糖尿病、非酒精性脂肪性肝病以及动脉粥样硬化等多种慢性疾病的重要共同发病基础。脂多糖(LPS)在这一过程中发挥关键作用,可诱导并放大炎症反应,从而促进相关疾病的发生与发展。
那么,脂多糖是如何由肠道内的正常成分转变为影响机体健康的重要因素的?机体又可以通过哪些机制对其进行调控,以维持生理稳态?本文将从机制层面系统分析LPS的作用路径及其对健康的影响。
♥
▸ 脂多糖的定义与特性
脂多糖(Lipopolysaccharide,简称LPS)是革兰氏阴性菌细胞壁外膜特有的结构大分子复合物,由三个功能区域共价连接组成的异源多糖-脂质复合物,三个区域分别承担不同生理功能。
革兰氏阴性菌膜由两层细菌膜组成,分别是外层和内层膜,外膜富含脂多糖(LPS)。
脂多糖(LPS)是两性分子,类脂A部分疏水,多糖部分亲水,所以LPS能够在细菌表面形成稳定的双亲结构,维持外膜完整性,同时作为屏障抵抗抗菌物质进入细菌体内。
↘ 脂多糖与内毒素的关系
脂多糖之所以被称为”内毒素”,是因为它是革兰氏阴性菌细胞外膜的重要结构成分,通常不以游离形式主动分泌。在细菌死亡或裂解时会大量释放出来,这一特点与由活菌主动分泌的“外毒素”形成鲜明对比,因此得名“内毒素”。
↘ 内毒素与外毒素的主要区别
编辑
需要注意的是,在感染过程中,细菌不断生长和死亡,会持续释放脂多糖;而在严重感染或抗生素治疗后,大量细菌同步裂解,可能在短时间内释放大量LPS,从而加重炎症反应,严重时可引发内毒素相关的全身炎症反应综合征。
▸ 脂多糖的分子结构
LPS分子从内到外分为三个部分:最内层是类脂A,中间是核心多糖,最外层是O抗原(O特异性多糖),三个部分共价连接形成完整LPS分子。
编辑
doi.org/10.3389/fimmu.2025.1588129
★ 每个部分结构和功能都不同:
•类脂A:嵌入外膜磷脂双层,是LPS的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构;
•核心多糖:连接类脂A和O抗原,结构相对保守,是革兰氏阴性菌共同抗原成分;
•O抗原:最外层,是多糖重复单位,结构变异性最大,决定细菌血清型特异性,是细菌逃避免疫识别的重要方式。
编辑
doi.org/10.5217/IR.2014.12.2.90
这种三层结构设计是革兰氏阴性菌长期进化结果,它既保护细菌本身,也决定了它和人体免疫系统相互作用方式,类脂A是毒性中心,O抗原是免疫逃逸,这种结构对应功能的关系便于更好理解它对健康影响。
★ 脂多糖的结构多样性决定其生物活性差异
不同革兰氏阴性菌的脂多糖(LPS)在结构上存在显著差异,尤其是类脂A部分在酰基链数量、长度以及磷酸化修饰上的变化,会直接影响其免疫激活能力。因此,并非所有革兰氏阴性菌的LPS都具有相同毒性,共生菌来源的LPS通常显著低于典型致病菌。
很多人将“革兰氏阴性菌”与“强内毒素”直接等同,但实际上,不同细菌来源的LPS在毒性上差异很大。理解这种差异,有助于我们更准确地区分共生菌与致病菌的生物学影响。
↘ 类脂A:脂多糖的毒性中心和生物活性中心
类脂A嵌入外膜磷脂双层,是脂多糖的毒性中心和生物活性中心,人体对LPS的免疫识别主要识别类脂A结构。LPS的大部分生物学活性,包括毒性和免疫刺激性,都由类脂A部分决定,类脂A结构变异直接改变LPS毒性强弱,六酰化饱和类脂A毒性最强,酰基链减少毒性显著下降。
编辑
doi.org/10.5217/IR.2014.12.2.90
不同来源的类脂A结构与毒性差异:
•致病菌(如大肠杆菌、沙门氏菌):类脂A多为六酰化,且具有完整的双磷酸结构,与TLR4-MD2亲和力高,能够强烈激活免疫反应。
•肠道共生菌(如拟杆菌属):类脂A通常为五酰化或四酰化,并伴随去磷酸化或其他修饰,与受体结合能力较弱,炎症活性显著降低(在部分实验中可低几个数量级)。
•环境调控型细菌(如耶尔森氏菌):其类脂A结构可随温度变化而调整,在环境温度下多为低酰化形式,而在37℃宿主体内转为高酰化形式,从而增强毒性。
编辑
doi: 10.1128/mSystems.00046-17.
如上图所示,拟杆菌门(Bacteroidetes)是人类肠道微生物群中脂多糖(LPS)生物合成能力的主要贡献者。
↘ 核心多糖:连接类脂A和O抗原的保守结构
核心多糖位于类脂A和O抗原之间,主要作用是连接两个部分,它的结构相对保守,在同一属的不同细菌之间结构大多相似,含有特殊的糖分子庚糖和KDO。
核心多糖可以分为两个部分:
•内核心:靠近类脂A,含有特殊的糖分子:3-脱氧-D-甘露-辛酮糖酸(简称KDO)和L-甘油-D-甘露庚糖,这两种糖在其他地方很少见,是LPS核心多糖特征性成分。内核心结构非常保守,不同革兰氏阴性菌之间变化很小。
•外核心:连接内核心和O抗原,由己糖组成,结构比内核心变异大一些,但仍然比O抗原保守很多,同一属细菌外核心结构相似。
核心多糖带有多个负电荷,能够结合二价阳离子比如镁离子钙离子,这些阳离子中和负电荷,稳定LPS在细菌外膜的结构,如果去掉阳离子,LPS结构将变得不稳定,外膜通透性增加,细菌容易被抗菌物质杀死。
↘ O抗原:决定细菌特异性的高度变异部分
O抗原是LPS分子最外层的多糖重复单位,是LPS中变异性最大的部分,不同血清型革兰氏阴性菌O抗原结构不同,这种高度变异是细菌逃避免疫识别的重要进化策略。O抗原高度变异直接关系到细菌致病性和免疫识别,但是O抗原本身基本没有毒性,主要影响细菌免疫原性和致病性,不直接影响LPS毒性强弱。
O抗原由多个相同的寡糖重复单位聚合而成,每个重复单位通常含有2-6个糖分子,不同细菌重复单位的糖组成、排列顺序、连接方式都可以不同,所以变异非常大,理论上可以产生成千上万种不同O抗原结构。
实例:E. coli O157:H7(常见的致病性肠出血性大肠杆菌)与E. coli O26、O111等其他血清型的区别,本质上就是O抗原多糖重复单位的结构不同。有的重复单位含有不同种类的糖(葡萄糖、半乳糖等),有的糖连接方式不同(α-1,3还是β-1,4),排列顺序也不同。因此针对O157的抗体一般难以有效识别O26等其他血清型,但在个别情况下可能存在有限的交叉反应。
▸ 光滑型脂多糖和粗糙型脂多糖的差异
完整脂多糖(LPS)含有O抗原叫做光滑型LPS,缺失O抗原只剩下类脂A和核心多糖叫做粗糙型LPS,也叫脂寡糖(LOS),两者在稳定性、免疫原性和致病性上都有显著差异。
编辑
编辑
doi.org/10.3390/ijms24098395
LPS(脂多糖)结构示意图:图中亮红色的LPS锚定在革兰氏阴性(G-)细菌的外膜上。根据O抗原和核心区(core)的长度,可将LPS分为光滑型(S)、半粗糙型(SR)、粗糙型(R)和深度粗糙型(DR)。从LPS最外层到最内侧疏水部分,其结构变异性逐渐降低。
♥
▸ 脂多糖对革兰氏阴性菌生存的影响
脂多糖(LPS)不仅仅是致病因子,它对革兰氏阴性菌自身生存具有非常重要的生理功能,维持外膜结构完整性,抵抗抗菌物质入侵,保护细菌生存,虽然部分菌株即使缺失或改变LPS结构仍可存活,但是其生理功能和适应性会显著受损。
脂多糖对革兰氏阴性菌的主要生理功能:
①维持外膜结构完整性:脂多糖是革兰氏阴性菌外膜主要成分,占外膜干重三分之一以上,LPS分子通过二价阳离子交联形成稳定网状结构,维持外膜通透性和结构完整性,如果缺失LPS,外膜结构破坏,细菌存活能力下降。
②形成通透屏障抵抗抗菌物质:LPS外层亲水内层疏水,形成选择性通透屏障,能够阻挡疏水抗菌物质、胆汁盐、补体、溶菌酶进入细菌体内,保护细菌免受宿主防御物质和抗生素攻击,增加细菌耐药性。
③抵抗宿主免疫攻击:O抗原能够保护细菌不被补体激活和吞噬细胞吞噬,帮助细菌逃避免疫清除,增加细菌致病性,有O抗原的菌株更容易引起全身性感染。
④介导细菌粘附:LPS能够介导细菌粘附到宿主黏膜上皮细胞,帮助细菌定植,这是感染第一步,所以LPS对细菌定植也很重要。
因为脂多糖对细菌生存这么重要,所以几乎所有革兰氏阴性菌都必须合成LPS,只有极少数例外,比如某些衣原体可以缺失。
▸ 肠道中的脂多糖与人体屏障系统
据估计,人类结肠中含有约10¹³–10¹⁴个细菌,总生物量约为数百克(通常约0.2–0.5 kg)。这些细菌在生命活动过程中可产生脂多糖(LPS)。研究表明,以大肠杆菌为代表的革兰氏阴性菌,其单个细胞所含LPS约为几飞克至几十飞克(约2–50fg)。基于此进行粗略估算,肠道中LPS的总量大致处于几十毫克至数百毫克的范围,具体取决于菌群组成及生理状态。
然而,静脉注射LPS的致死剂量仅为1–2微克。也就是说,肠道内的LPS总量,可能是致死剂量的千倍甚至百万倍。那么为什么我们不会被”毒死”?答案在于——人体的屏障系统。
↘ 肠道屏障:把”危险”关在门外
人体的上皮组织(比如肠道内壁)在进化过程中,形成了极其高效的防御结构,能够将有害物质隔离在外。
在正常情况下,肠道细菌及其产生的LPS主要存在于肠腔内部,它们被粘液层和上皮细胞牢牢阻挡,不会接触到体内的深层组织。
研究发现,只要这些细菌停留在肠腔一侧,就不会对肠道细胞造成伤害。真正的危险发生在当LPS接触到上皮细胞”背面”(基底侧)时,毒性才会显现。
↘ 肠道屏障破坏的风险因素
当肠道屏障被破坏时,情况就会发生改变:细菌可能穿过粘液层,从细胞之间的缝隙渗透,甚至直接穿过细胞进入更深层组织。一些致病菌本身就具备”入侵能力”,可以主动突破防线。一旦细菌或大量LPS进入血液,免疫系统会迅速响应,但如果负荷过高,可能引发严重后果,比如全身炎症反应、败血症甚至败血性休克。
以下人群风险更高:
-新生儿(免疫系统尚未成熟);
-老年人或重症患者;
-免疫功能受损的人群;
-长期使用导尿管等侵入性器械者;
-肠道存在炎症、损伤或肿瘤的人。
▸ 肠道暴露导致脂多糖转移到循环中
在正常生理条件下,血浆中LPS水平极低。这是因为健康的肠道限制了LPS分子进入血液的途径。尽管持续暴露于LPS,肠细胞和结肠细胞对这些刺激表现出低反应状态,部分原因在于这些细胞中Toll样受体4(TLR4)表达较低。这种肠道耐受机制最大限度地减少了肠腔内的炎症反应。
此外,肠道微生物群中LPS的暴露在免疫系统的发育和成熟中起着关键作用,训练肠道相关淋巴组织(GALT)中的调控T细胞。个体的LPS谱系取决于肠道微生物群的组成,而肠道微生物群的组成因地理和生活方式等因素而有所变化。
▸ 脂多糖在肠道中”常态存在”的生理意义
很多人一听说脂多糖(LPS)有害,就想把肠道里的LPS彻底清除。实际上,这既不现实,也没有必要。相反,维持生理范围内的LPS暴露,对健康是有意义的。
在健康婴儿、成年人和老年人肠道菌群中,革兰氏阴性菌占有一定比例(如拟杆菌门)。这些细菌在更新过程中会不断死亡、裂解,从而释放LPS到肠腔中。因此,肠道内持续存在低水平LPS是一种正常的生理现象,而不是异常状态。生理水平的脂多糖具有以下作用:
•促进免疫系统正常发育:无菌动物由于缺乏包括LPS在内的微生物刺激,免疫系统发育不成熟,免疫应答能力不足,更容易出现过敏和自身免疫问题。适度的LPS等刺激有助于免疫系统建立“耐受”和”分辨能力”,这是”卫生假说”的重要机制基础之一。
•维持先天免疫的基础警戒状态:低水平的微生物信号可以让机体免疫系统保持”准备状态”。如果完全缺乏这类刺激,机体在真正遇到病原体时,可能反应迟缓,反而更容易感染。
•有助于睡眠:2024年发表的一项研究表明当LPS注入门静脉循环时,会引起睡眠增加和体温升高。门静脉循环负责将来自胃、小肠和大肠(这些器官中存在肠道微生物群)的血液输送到肝脏。像LPS这样的微生物分子可以通过“转位”过程进入门静脉,从而进入宿主体内环境。
编辑
事实上,在健康的人类、大鼠和小鼠体内,脂多糖天然存在于门静脉和全身循环血液中,是一种来源于原核生物的生理性血浆成分。
研究进一步暗示日常生活中的一些刺激会进一步促进LPS的转位,从而提高其在血液中的水平。例如,一顿高脂餐(如三片涂有50克黄油的吐司)可使人体血浆LPS水平升高约50%。此外,少量饮酒、急性或慢性睡眠不足以及轻度心理压力等常见情况,也都会增加循环中的LPS水平。
!
关键观点
问题不在”有没有”,而在”是否过量”。真正有害的是脂多糖异常升高并进入循环(如肠屏障受损导致的”内毒素血症”),这会诱导慢性低度炎症,进而与代谢性疾病等相关。因此,我们关注的重点不是”全部消灭LPS”,而是避免其异常升高和大量入血。
♥
▸ 肠道是人体内脂多糖的主要来源
在健康成年人中,肠道是体内LPS(脂多糖)最主要的产生和储存场所。健康成年人肠道内约有10¹³–10¹⁴数量级的微生物,其中约20%–40%为革兰氏阴性菌(以拟杆菌门为主),这些细菌在持续更新过程中不断裂解并释放LPS。
相比之下,口腔(如牙周炎时)虽也可产生LPS但总体规模较小,呼吸道和皮肤等部位菌量更低,对全身LPS贡献有限,但是注意在严重局部感染或全身感染时,这些部位也可能成为重要来源。
▸ 关键分界:是否进入循环
一个非常重要但常被忽略的点是:肠道中LPS很多≠血液中LPS一定高。
↘ 在健康状态下:
•肠道屏障(上皮细胞+紧密连接+黏液层+IgA)有效阻挡LPS进入体内;
•只有极少量LPS可进入循环;
•血浆LPS通常处于低水平(常见报道为pg/ml级别);
•这个水平属于生理暴露,不会引发系统性炎症。
↘ 何时变成问题?当出现以下情况时:
•肠道屏障受损(如”肠漏”);
•肠道菌群失衡(如革兰阴性菌过度增殖);
•高脂饮食促进LPS转运(经乳糜微粒)
就会导致进入循环的LPS增加(而不是肠道LPS本身增加才是关键),这就是所谓的代谢性内毒素血症,其特点是:
•血中LPS轻度但持续升高;
•激活TLR4等炎症通路;
•诱导慢性低度炎症;
•并与胰岛素抵抗、肥胖、非酒精性脂肪肝、动脉粥样硬化相关。
代谢性内毒素血症的经典模型认为,LPS可能进入全身循环并促进慢性炎症。该经典模型指出:
(1) 西式饮食可能增加产生LPS的细菌数量并增加脂肪吸收。
(2) LPS可在局部发挥作用并诱导炎症反应,也可通过刷状缘的移位转运以及在乳糜微粒内进入全身循环。
(3) 主要来源于肝脏的LBP与循环中LPS的脂质A部分结合。
▸ 脂多糖进入血液循环的主要途径
LPS从肠道进入血液循环主要通过两条途径:一是肠道通透性增加(肠漏)导致经细胞间隙进入循环,二是在脂肪吸收过程中结合乳糜微粒,经淋巴系统进入血液。这两条途径共同影响体内LPS的总体水平。
↘ 第一条途径:肠漏(细胞间隙通透增加)
当肠道上皮紧密连接受损,细胞间隙通透性增加,LPS可以从肠腔进入黏膜下组织,并进一步进入门静脉循环。这一过程不依赖脂肪摄入,而主要取决于肠屏障完整性。长期通透性升高,是循环LPS持续升高的重要原因之一。
↘ 第二条途径:乳糜微粒转运
LPS具有一定亲脂性。在摄入脂肪后,肠道形成乳糜微粒以吸收和运输脂类物质,部分LPS可结合在乳糜微粒上,随其进入淋巴系统,最终进入体循环。这一过程与脂肪摄入量相关:脂肪摄入越多,乳糜微粒生成越多,LPS转运量也可能相应增加。这也是高脂餐后出现”餐后内毒素血症“的一个重要机制。
这两条途径通常同时存在:肠道通透性决定基础LPS水平,而餐后乳糜微粒可造成短时升高,两者叠加,可能导致整体水平上移。
★ 短时过量脂肪摄入可能导致脂多糖过多的危害
当长期高脂摄入、频繁产生大量乳糜微粒,或肝脏清除能力下降时,可能出现LPS清除不及、循环水平升高的情况,从而与慢性低度炎症相关。
因此,并不需要避免脂肪摄入本身,而是应关注总量与分配:避免单次摄入过多脂肪,有助于降低一次性LPS负荷。只要控制每餐脂肪量,不要一次摄入太多脂肪,减少单次转运LPS量,就不会对健康造成危害,完全禁止脂肪摄入也不利于健康,关键是量和频率。
这个也解释了为什么中国人说“饱食伤身”,一次吃太多脂肪不仅热量过剩,还带来大量LPS进入循环,导致一次炎症峰,反复多次就是慢性炎症,所以吃七八分饱不仅减少热量,也减少LPS,对健康更有利。
♥
▸ 脂多糖的半衰期与清除动力学
LPS在人体内的半衰期取决于其浓度和人体解毒能力。生理低剂量LPS进入循环后,半衰期大约是几分钟到十几分钟,能够被肝脏快速清除,但是高剂量LPS超过肝脏清除能力,半衰期显著延长,能够在循环中停留几个小时,持续激活炎症。
了解半衰期能够帮助我们理解为什么低剂量持续暴露比一次性高剂量更有害,为什么慢性持续LPS升高导致慢性病。
▸ 肝脏:清除循环LPS的主要器官
进入门静脉的脂多糖约有80–90%在肝脏被清除,主要由Kupffer细胞介导,肝脏因此成为清除循环LPS的关键器官。
正常肝功能有助于维持低水平LPS,而功能受损时清除能力下降,易导致其升高。除直接吞噬外,LPS还可与LDL、HDL等血浆脂蛋白结合,并被肝细胞和Kupffer细胞摄取,从而进一步促进清除。
编辑
↘ 肝脏功能能够影响脂多糖的清除能力
因此,肝脏构成防止LPS进入体循环的重要屏障。肝功能正常,清除能力强,能够快速清除LPS,肝功能下降,清除能力下降,相同剂量LPS半衰期延长,炎症更明显,所以肝功能不好的人更容易发生内毒素血症。
编辑
▸ 肠道碱性磷酸酶对LPS的解毒作用
肠道上皮分泌的碱性磷酸酶(intestinal alkaline phosphatase, IAP)可通过去除LPS脂质A上的磷酸基团,将其转化为低毒形式,显著降低其激活TLR4-MD2受体的能力,从而减弱炎症反应。
↘ 碱性磷酸酶能够减弱脂多糖导致的炎症反应
这一过程发生于LPS进入体内之前,是肠道局部解毒的重要机制和防止系统性炎症的第一道屏障。IAP由小肠上皮刷状缘表达,直接与肠腔内LPS接触;其去磷酸化作用可使LPS炎症活性降低数十至数百倍。
动物研究表明,缺失IAP会增加对LPS的敏感性并加重炎症反应。IAP为含锌酶,锌对其结构稳定和催化活性至关重要,缺锌可降低其功能并增加活性LPS负荷。部分研究还提示,高脂饮食可能抑制IAP表达或活性,而低脂或特定膳食模式有助于维持其功能,但相关结论尚不一致。
▸ 低密度脂蛋白与脂多糖的相互作用
脂多糖(LPS)进入循环后,一部分游离存在,另一部分与低密度脂蛋白(LDL)结合。结合后,LPS的疏水结构被包埋于LDL颗粒内,减少与免疫细胞表面TLR4受体的接触,从而降低其炎症活性,这是一种机体的保护性机制。
↘ LDL与LPS的结合具有双重效应
然而,携带LPS的LDL更易被巨噬细胞通过清道夫受体摄取,促使其转化为富含胆固醇的泡沫细胞,进而在血管壁沉积形成脂纹,推动动脉粥样硬化的发生与发展。
因此,LDL与LPS的结合具有双重效应:既可降低游离LPS的炎症活性,又促进泡沫细胞形成和动脉粥样硬化进展。当LPS与LDL同时升高时,心血管风险显著增加,且两者具有协同放大效应。循环LPS水平升高会增强LDL的致动脉粥样硬化作用,这是其促进心血管疾病的重要机制之一。
▸ LPS清除的多器官协作(肝-脾-肾)
除肝脏外,脾脏和肾脏亦参与循环LPS的清除与代谢:肝脏为主要清除器官,脾脏提供辅助清除,肾脏负责排泄降解产物。整体上,网状内皮系统(单核-巨噬细胞系统)协同维持LPS稳态。
↘ 肝脏主要清除、脾脏辅助清除
进入循环的LPS大多由肝脏Kupffer细胞清除,其余部分可被脾脏巨噬细胞摄取。肾脏对完整LPS的直接清除有限,主要排泄其降解后的小分子片段,参与代谢末端处理。
LPS清除依赖单核-巨噬细胞系统的吞噬功能;当疾病、炎症或药物导致该系统功能下降时,清除效率降低、半衰期延长,循环水平升高并加重炎症反应。
总体而言,LPS清除体现多器官协同的分层防御:肝脏为核心屏障,脾脏补充清除,肾脏负责排泄。该体系功能正常时可有效控制LPS水平;若输入增加(如肠屏障受损或饮食因素)且清除能力下降(如肝功能或免疫功能减弱)并存,则可能突破防线,导致慢性低水平内毒素血症。
♥
▸ 肠道菌群失调
当肠道菌群失调时,菌群结构和代谢功能发生改变,可能导致脂多糖负荷及其炎症活性升高。肠腔中LPS水平上升,同时在饮食和屏障因素作用下进入循环的LPS增加。因此,通过改善菌群结构与代谢环境,可以从源头降低高炎症活性的LPS负荷。
健康成年人肠道中本就富含革兰氏阴性菌(如拟杆菌门)。但菌群失调(如高脂、低纤维饮食)会改变其结构,使部分菌群(尤其肠杆菌科)增加,同时短链脂肪酸等代谢产物减少,从而共同影响LPS相关效应。
不同来源的LPS免疫活性差异显著:拟杆菌来源LPS炎症活性较低,而大肠杆菌来源则更易诱导炎症。因此,关键不在于阴性菌数量多少,而在于高炎症活性LPS的比例是否上升。
↘ 在吸收方面,LPS进入循环主要通过:
•与脂质结合,经乳糜微粒转运(高脂饮食关键机制);
•肠屏障功能改变(紧密连接受损)。
因此,高脂低纤维饮食的作用是双重的:一方面改变菌群结构,另一方面显著促进LPS进入血液循环,共同提高循环LPS水平。
↘ 膳食纤维则通过不同路径发挥作用:
•促进产短链脂肪酸菌生长(如产丁酸菌);
•增强肠道屏障功能;
•调节菌群整体生态。
从而降低脂多糖相关炎症负荷。
这一机制把”菌群失调”和”慢性炎症”连接起来,但更准确的路径应理解为:
菌群失调 → LPS结构与负荷改变+代谢环境改变 → LPS更容易进入循环 → 诱导低度慢性炎症 → 胰岛素抵抗、脂肪肝、动脉硬化等问题 → 参与多种慢性疾病发生发展。
这里的关键,不是单一指标(比如阴性菌比例),而是菌群整体生态与宿主相互作用。所以,调节肠道菌群的核心,不是简单”降低革兰氏阴性菌”,而是恢复菌群结构与功能的平衡,从而降低高炎症活性的LPS负荷。
▸ 小肠细菌过度生长
正常情况下,小肠受胃酸和蠕动影响,细菌浓度远低于结肠(约10¹¹–10¹² CFU/ml的万分之一),因此LPS水平较低,即使全部吸收,总量也有限。
↘ 小肠细菌过度生长使脂多糖水平显著升高
发生小肠细菌过度生长(SIBO)时,小肠细菌增至10⁵–10⁸ CFU/ml,且多为革兰氏阴性菌,使腔内LPS浓度升高数十至上百倍。由于小肠吸收面积大、通透性高,更多LPS进入门静脉循环,导致循环水平升高。同时,SIBO还可损伤黏膜、破坏紧密连接,进一步增强LPS吸收,形成叠加效应。因此,不明原因的慢性LPS升高应考虑SIBO。
LPS的影响不仅取决于“数量”,还取决于“产生部位”:结肠产量高但吸收受限,小肠产量较低却更易入血。研究显示,SIBO患者循环LPS显著升高,根除后可下降并伴随症状改善,提示其为重要来源之一。这也解释了SIBO与多种肠外疾病的关联,即通过增加LPS吸收诱发全身慢性炎症。
▸ 牙周炎:被低估的”持续性LPS输入源”
牙周炎中,牙周袋内聚集大量革兰氏阴性厌氧菌(如牙龈卟啉单胞菌),持续释放脂多糖。在局部炎症和血管通透性增加的情况下,这些LPS可以进入血液循环,成为全身LPS负荷的长期来源之一。
很多人把牙周炎当作”口腔问题”,但忽略了一点:牙龈是一个高度血管化、长期暴露炎症的组织,这意味着,口腔里的炎症信号,是可以”进入全身”的。
↘ 牙周炎的核心环境是牙周袋:
•厌氧环境;
•大量革兰氏阴性菌;
•持续细菌更新与裂解释放脂多糖。
▸ 脂多糖与肠道屏障损伤的正反馈循环
脂多糖不仅可通过肠道进入循环,还可反过来破坏肠道屏障结构,增加通透性(”肠漏”),从而进一步促进LPS吸收,形成正反馈循环。
研究表明脂多糖可激活肠上皮细胞中的NF-κB通路,诱导炎症因子释放。这些炎症信号可导致紧密连接蛋白(如occludin、ZO-1)发生内吞和降解,从而破坏紧密连接结构。
结果是肠道通透性增加,使更多LPS从肠腔进入门静脉及全身循环。升高的LPS又进一步加重屏障损伤,形成循环:
LPS升高 → 屏障受损 → 通透性增加 → LPS吸收增加 → LPS进一步升高。
这一循环可持续放大低度慢性炎症状态。这表明一旦肠道屏障受损,单一干预往往难以逆转进程;同时降低LPS来源与修复屏障结构,可能更有助于打破这一循环。
▸ 其他升高脂多糖水平的风险因素
↘ 时间维度:停留越久→吸收越多(便秘)
便秘本质是”肠道内容物滞留”。停留时间延长→细菌裂解释放更多LPS + 与肠壁接触更久→吸收增加。同时伴随菌群失衡→进一步增加LPS来源。
结果:脂多糖”暴露时间+浓度”双升高。
↘ 屏障维度:肠道越”漏”→进入越多(压力/睡眠不足)
慢性压力通过皮质醇破坏紧密连接→肠道通透性增加。原本被阻挡的LPS更容易进入血液。同时压力还会改变菌群→增加LPS产生。
结果:LPS”通行能力”增强。
↘ 储存维度:储得越多→释放越久(肥胖)
肥胖不是单纯”多脂肪”,而是一个LPS放大系统:脂肪组织储存LPS并持续释放;菌群失调→产生更多LPS;肠道屏障变差→吸收更多LPS。
编辑
结果:LPS”长期维持在高水平”。
↘ 生活方式和饮食因素
多种生活方式和饮食因素通过”增加LPS产生+增加LPS吸收“两条路径,提高体内LPS水平:
•高脂饮食:一方面促进乳糜微粒把LPS带入血液,另一方面改变菌群增加革兰阴性菌→LPS显著升高。
•过量饮酒:破坏肠道屏障(肠漏)+ 改变菌群→更多LPS进入血液,加重肝脏炎症。
•吸烟:影响口腔和肠道菌群+ 破坏屏障→多来源增加LPS。
•膳食纤维不足:有益菌减少、短链脂肪酸下降→菌群失衡+ 屏障变差→LPS升高。
•长期抗生素:杀死有益菌、促使阴性菌占优势+ 损伤屏障→LPS增加。
♥
▸ LPS与TLR4的识别与信号传导
LPS通过与细胞膜上的Toll样受体4(TLR4)复合物结合,激活先天免疫细胞,其生物学效应由此启动。作为典型的病原体相关分子模式(PAMP),LPS被TLR4这一模式识别受体特异性识别。
↘ 脂多糖的识别过程需要多种蛋白质协同作用:
•LPS结合蛋白(LBP):首先结合循环中的游离LPS,从聚集体中提取LPS分子,并将其运输至CD14;
•CD14:将LPS转移至TLR4-MD2复合物;
•TLR4-MD2复合物:MD2蛋白结合LPS的脂肪酸A部分。结合后,MD2发生构象变化,导致TLR4二聚化并启动下游信号转导。
▸ TLR4多态性影响LPS敏感性与疾病风险
TLR4基因多态性(如Asp299Gly、Thr399Ile)可改变受体结构,降低其与LPS的结合亲和力和敏感性,从而减弱炎症反应,并影响慢性疾病的易感性。
因此,在相同脂多糖水平下,不同个体的炎症程度和疾病风险可存在显著差异。携带这些变异的个体炎症反应较低,动脉粥样硬化风险可能下降,但对革兰氏阴性菌感染的易感性及严重脓毒症风险增加,体现出权衡效应。相反,无变异者对LPS更敏感,更易发生强烈炎症反应及相关慢性疾病,需要更积极地控制LPS水平。
除上述多态性外,其他遗传变异亦参与调控LPS敏感性,共同决定个体差异。这也反映了遗传与环境的相互作用:环境决定暴露水平,遗传决定反应强度,两者共同影响疾病风险。
编辑
doi.org/10.3390/ijms24098395
▸ 脂多糖的免疫识别与炎症激活
↘ 识别与递呈(胞外阶段)
LPS在循环中先由脂多糖结合蛋白(LBP)结合并单体化,随后转移至CD14(mCD14或sCD14),再递交给TLR4-MD2复合物。MD2结合脂质A后诱导TLR4二聚化,启动信号转导。LBP和CD14提高了系统对低浓度LPS的敏感性。
↘ 两条主要信号通路(TLR4下游)
MyD88依赖通路(主要炎症通路):通过IRAK–TRAF6–TAK1–IKK级联,激活NF-κB,诱导TNF-α、IL-1β、IL-6等促炎细胞因子产生,是LPS炎症反应的核心机制。
TRIF依赖通路:在内体中激活TBK1–IRF3,诱导I型干扰素(IFN-α/β)产生,并促进共刺激分子表达,连接先天免疫与适应性免疫。
↘ 细胞内识别与炎症放大
NOD样受体(Nod1/Nod2)识别细菌肽聚糖成分(不是直接识别LPS),通过RIP2激活NF-κB,与TLR4信号协同放大炎症反应。
↘ 炎症小体激活(第二放大机制)
LPS作为”第一信号”诱导NLRP3和pro-IL-1β表达;ATP等作为”第二信号”激活炎症小体,caspase-1剪切成熟IL-1β,进一步放大炎症级联反应。
↘ 核心转录调控节点
NF-κB是关键汇聚点,几乎所有LPS诱导的促炎基因均依赖其激活,是慢性炎症持续存在的核心分子基础。
↘ 主要效应分子
TNF-α、IL-1β、IL-6共同介导LPS的炎症效应;CRP为IL-6驱动的临床替代指标,常用于炎症监测。
↘ 剂量决定结局
低剂量长期暴露:持续激活NF-κB → 慢性低级别炎症 → 代谢性疾病等。
高剂量急性暴露:细胞因子风暴 → SIRS/脓毒性休克。
♥
▸ 脂多糖与动脉粥样硬化
通常认为胆固醇是动脉粥样硬化的主要原因,但往往忽视了炎症因素,尤其是LPS对内皮细胞的直接激活作用。
血管内皮细胞表达TLR4和CD14。LPS与TLR4结合后激活NF-κB信号通路,诱导细胞间黏附分子-1(ICAM-1)和血管细胞黏附分子-1(VCAM-1)的表达。这些黏附分子为循环中的单核细胞和淋巴细胞提供黏附位点。
↘ 脂多糖作用于内皮细胞促进动脉粥样硬化
黏附的白细胞随后穿越内皮进入血管壁,单核细胞分化为巨噬细胞,摄取氧化低密度脂蛋白(oxLDL),形成泡沫细胞。泡沫细胞的聚集构成脂肪纹,这是动脉粥样硬化的早期病变。
此外,LPS还可诱导内皮细胞产生促炎细胞因子(如TNF-α、IL-6),进一步促进炎症反应、白细胞浸润及血管平滑肌细胞增殖,加速病变进展。
同时,LPS可通过增加活性氧生成、减少一氧化氮(NO)生物利用度,引发内皮功能障碍,表现为血管舒张能力下降及促凝状态增强。
因此,持续升高的LPS水平可通过直接作用于内皮细胞,促进动脉粥样硬化的发生和发展。
▸ 脂多糖与2型糖尿病及胰岛素抵抗
长期升高的循环LPS可激活脂肪组织、肝脏等处的巨噬细胞,促使其分泌TNF-α、IL-6等炎症因子。这些因子通过激活丝氨酸/苏氨酸激酶,促进IRS-1发生丝氨酸磷酸化,从而抑制其正常的酪氨酸磷酸化,阻断胰岛素信号传导,导致胰岛素抵抗。
↘ 降低脂多糖可改善胰岛素敏感性并降低血糖
在此状态下,β细胞需代偿性分泌更多胰岛素以维持血糖,但长期负担会导致功能衰竭,最终发展为2型糖尿病。研究表明,2型糖尿病患者循环LPS水平显著升高,而降低LPS可改善胰岛素敏感性并降低血糖,支持其在发病中的关键作用。
因此,糖尿病管理不应仅关注血糖,还应调节肠道菌群,从源头降低LPS水平。该机制也解释了部分体重正常者患病的原因:即使无肥胖,若存在菌群失调和LPS升高,仍可诱发炎症和胰岛素抵抗。对肠道菌群及LPS风险的评估,有助于实现更早期干预与预防。
▸ 脂多糖与非酒精性脂肪性肝病
肠道来源的脂多糖经门静脉直接进入肝脏。肝脏中的库普弗细胞高表达Toll样受体4(TLR4),可识别LPS并激活NF-κB信号通路,进而释放TNF-α、IL-1β等促炎细胞因子。
这些炎症因子一方面抑制肝脏胰岛素信号通路,降低脂肪酸氧化能力,促进甘油三酯在肝细胞内沉积,从而加重脂肪变性;另一方面可激活肝星状细胞,促进胶原合成和细胞外基质沉积,推动肝纤维化进展。
随着炎症持续存在,疾病可由单纯性脂肪肝逐步发展为非酒精性脂肪性肝炎(NASH),甚至进一步进展为肝纤维化和肝硬化。
↘ NAFLD患者存在脂多糖水平显著升高
研究显示,非酒精性脂肪性肝病(NAFLD)患者的门静脉及循环LPS水平显著升高;而降低LPS水平可减轻肝脏炎症反应,改善脂肪变性及纤维化程度,进一步支持LPS在NAFLD中的关键作用。
这一机制同样解释了为什么部分不超重、无饮酒史的人群仍会发生NAFLD:即使没有传统代谢风险因素,肠道菌群失调导致的LPS升高,依然可以驱动肝脏炎症和疾病进展。
▸ 脂多糖与高血压
↘ 脂多糖通过减少NO生成提高血管张力并升高血压
脂多糖可激活血管内皮细胞NF-κB通路,诱导促炎因子释放,并抑制内皮型一氧化氮合酶(eNOS)表达与活性,减少NO生成。NO减少会削弱血管舒张、增强收缩,进而提高血管张力并升高血压。
同时,LPS可损伤内皮结构、增加血管壁僵硬度和外周阻力;长期炎症还促进血管重构,使高血压逐渐固定化。动物研究表明,慢性低剂量LPS可升高血压,而降低LPS水平有助于改善血压,支持其在血压调控中的作用。
▸ 脂多糖与肥胖的相互促进
肥胖可促进脂肪组织炎症和脂多糖蓄积,而LPS介导的炎症又进一步干扰能量代谢、促进脂肪储存,二者形成相互促进的正向循环。
编辑
↘ 脂多糖干扰能量代谢、肥胖又促进脂多糖积累
此外,LPS还可能通过影响下丘脑能量调节,干扰食欲和能量摄入,进一步推动体重增加。
研究表明,减重可降低脂肪组织炎症和LPS负荷,改善胰岛素敏感性,从而有助于打破这一循环。
这一循环提示,单纯依赖热量限制可能不足以优化代谢状态;若同时改善肠道菌群、降低LPS水平,可能更有助于提高减重效果和代谢改善程度。
▸ 脂多糖与神经系统疾病
循环LPS能够通过多种途径穿过血脑屏障进入脑实质,激活小胶质细胞产生炎症,所以外周LPS升高能够影响中枢神经系统功能,参与神经精神疾病发生发展。
LPS分子量大约10-20 kDa,属于大分子,但是研究证实,循环LPS能够穿过血脑屏障进入脑内,主要通过几个途径:
•血脑屏障上有特定转运系统:能够转运LPS进入脑内,低浓度LPS就能够转运;
•炎症能够破坏血脑屏障完整性:LPS本身引发外周炎症,炎症介质破坏血脑屏障,更多LPS能够进入脑内,形成恶性循环;
•绕过血脑屏障:LPS能够通过血脑屏障薄弱部位比如延髓最后区进入脑内,然后扩散到其他脑区。
↘ 脂多糖入脑激活小胶质细胞致炎
进入脑内的脂多糖能够激活小胶质细胞,小胶质细胞是脑内巨噬细胞,表达TLR4,激活后产生促炎细胞因子,引发神经炎症,损伤神经元,所以外周LPS升高能够增加中枢神经炎症,参与抑郁症、帕金森病、阿尔茨海默病发生发展。
LPS能够穿过血脑屏障进入中枢这个事实,把外周肠道LPS和中枢神经疾病连接起来了,肠道菌群失调→LPS升高→进入中枢→激活小胶质细胞→神经炎症→神经精神疾病,这个完整通路现在已经被越来越多研究证实,这就是”肠脑轴”重要分子机制,所以改善肠道菌群降低LPS,能够帮助预防和改善神经精神疾病。
这一机制也解释了为什么肠道菌群失调能够影响情绪和认知,脂多糖进入中枢激活炎症就是重要介导。
编辑
doi.org/10.1021/acschemneuro.8b00733
♥
1
质谱检测
脂质A中的脂肪酸为3-羟基脂肪酸(3OH-FAs),其链长和酰化模式具有多样性,并可能影响LPS的免疫原性。
由于酯化的3OH-FAs仅来源于脂质A,因此其水平可作为循环中LPS的替代指标。早期采用GC/MS对其进行分离和定量;近年来发展出HPLC/MS/MS方法,通过计算总3OH-FAs与游离3OH-FAs的差值来定量酯化部分,从而实现更高灵敏度和准确性的LPS检测。
2
血浆脂多糖定量
血浆LPS定量检测是评估内毒素血症的重要方法之一,常用鲎试验(LAL)可用于检测血浆中LPS水平,反映循环内毒素负荷。
LAL试验基于鲎变形细胞溶解物对LPS的反应,可通过比浊或显色方法进行定量,检测灵敏度可达皮克级别。
↘ 但需要注意:
血浆中存在多种干扰因素(如脂蛋白、蛋白结合等),可能影响检测结果,因此不同实验条件下数值存在一定变异。
不同研究中报告的参考范围有所差异,临床上更常用于相对变化和趋势评估,而非绝对诊断标准。血浆LPS检测可用于研究或特定情况下评估内毒素水平变化,但在实际应用中通常需要结合其他指标综合判断。
3
炎症标志物间接反映
脂多糖可激活免疫系统,诱导IL-6等炎症因子释放,进而促进肝脏合成CRP,因此CRP和IL-6可以反映炎症反应水平。但需要强调的是CRP和IL-6是非特异性炎症指标,会受到感染、损伤、慢性疾病等多种因素影响。
在排除急性感染等因素的前提下,CRP(尤其hs-CRP)可以作为低度慢性炎症的实用监测指标,用于跟踪干预效果,但不能单独用于判断LPS水平。
4
肠道菌群检测推断LPS产生潜力
通过16S rRNA或宏基因组测序分析肠道菌群组成,可以从菌群结构角度推断LPS产生潜力,用于评估风险趋势。
LPS来源于革兰氏阴性菌,因此其相对丰度与LPS产生潜力相关,但这种关系是间接的、受多因素影响。
例如:
拟杆菌门虽为革兰阴性,但其LPS炎症活性差异较大,并非全部强致炎;
菌群功能、宿主状态、屏障功能等都会影响最终LPS水平;
菌群检测更适合用于风险评估和干预方向指导,而不是直接判断LPS实际水平。
5
谷禾健康肠道菌群检测评估LPS相关风险
谷禾报告对很多菌群多指标整合分析,可以更系统地评估LPS相关风险趋势,用于指导个体化干预。我们方法的价值在于从菌群结构和功能角度提供参考信息,但仍需结合临床指标(如炎症指标、代谢指标)综合判断。
↘ 高LPS风险的菌群特征
谷禾报告中高LPS风险通常表现为革兰氏阴性菌相对丰度偏高,伴随促炎菌增加、短链脂肪酸产生菌减少及综合评分升高,提示较高的LPS产生与炎症潜力。
典型特征包括:
•革兰氏阴性菌相对丰度升高→LPS来源增加(潜力增加);
•B/F比值升高→菌群结构向阴性菌倾斜;
•促炎革兰氏阴性菌增加→LPS炎症活性增强;
•短链脂肪酸产生菌减少→抗炎能力下降+屏障支持减弱;
•综合风险评分偏高→多因素叠加的结果。
这些特征反映的是LPS相关风险升高的趋势,提示需要从菌群和生活方式层面进行干预。
↘ 低LPS风险的菌群特征
低LPS风险通常表现为菌群结构相对平衡、短链脂肪酸产生能力良好、综合评分较低,提示LPS产生和炎症风险较低。
主要特征包括:
•革兰氏阴性菌比例在合理范围→LPS来源稳定;
•B/F比值平衡→菌群结构稳定;
•促炎致病菌未见明显富集→炎症驱动较低;
•短链脂肪酸产生菌充足→有助于抗炎和维持屏障;
•综合评分低→整体风险较低
低风险代表当前状态良好,但仍需维持健康饮食和生活方式以保持稳定。
6
结合肠道通透性综合评估LPS
LPS风险评估需要同时考虑“产生”和”吸收”两方面,即菌群结构与肠道通透性共同决定循环LPS水平。
关键理解三种情况:
•屏障受损(肠漏)时→即使LPS产生不高,也可能吸收增加;
•屏障正常时→即使LPS产生略高,进入血液的量可能有限;
•两者同时异常→LPS升高风险最大。
综合评估可以区分问题来源(“产多了”还是”漏多了”),从而更有针对性地干预,例如侧重调菌或修复屏障。
♥
1
修复肠道屏障—减少LPS吸收的根本措施
无论LPS升高的原因如何,修复肠道屏障是降低其进入循环的根本措施。完整的肠道屏障通过维持上皮细胞间的紧密连接,阻止LPS经细胞间隙进入血液;当屏障受损时,紧密连接蛋白减少、通透性增加,LPS更易入血。因此,恢复紧密连接完整性可有效减少LPS吸收并降低其循环水平。
①补充乳铁蛋白
乳铁蛋白是一种铁结合糖蛋白,可促进肠上皮细胞增殖与更新,维持紧密连接蛋白表达和屏障完整性,从而降低肠道通透性,减少LPS进入循环并降低其水平。
此外,乳铁蛋白具有特异性LPS结合结构域,能高亲和力结合并中和LPS,阻断其与免疫细胞膜TLR4受体结合,抑制下游炎症信号通路,减少促炎因子产生,从而直接抑制炎症反应。
②补充谷氨酰胺
肠上皮细胞更新迅速,需充足谷氨酰胺供能;其充足时可维持上皮更新和紧密连接蛋白合成,保持屏障完整与正常通透性,减少LPS经细胞间隙入血。
肠漏或屏障受损时,补充谷氨酰胺可促进上皮修复、增强紧密连接、降低通透性,从而减少LPS吸收,对此类人群尤为有益。
2
其他减少LPS吸收与转运的措施
①维生素D
可以上调紧密连接蛋白,降低肠道通透性,减少LPS跨上皮转运。
②改善便秘
缩短肠道转运时间,减少LPS在肠腔内累积及与肠壁接触时间,从而降低吸收机会。
③减轻压力+改善睡眠
通过降低HPA轴激活和皮质醇水平,改善紧密连接与肠屏障功能,减少LPS进入循环。
3
减少其他LPS产生来源
①治疗SIBO
小肠细菌过度生长增加潜在LPS来源,在肠屏障受损时更易转化为循环LPS,抗生素等针对性治疗可降低细菌负荷,从源头减少LPS产生。
②牙周治疗
牙周感染中革兰阴性菌持续释放LPS,可通过受损牙龈进入循环,系统治疗减少这一持续输入源。
4
控制每餐脂肪摄入
我们之前介绍过,吃完脂肪后,肠道合成乳糜微粒运输脂肪,LPS亲脂,结合到乳糜微粒上,随乳糜微粒进入淋巴循环,然后进入体循环,因此每餐脂肪越多,合成的乳糜微粒越多,进入循环的LPS越多,所以控制每餐脂肪量减少乳糜微粒,进而减少进入循环的LPS,降低循环LPS水平。
简单饮食调整:一餐不要吃太多脂肪,全天均匀分布脂肪,可以减少餐后LPS升高,减少累积炎症。
5
增加膳食纤维,黄酮、多酚等摄入
①芹菜素(apigenin)
芹菜素是一种广泛存在于温热带蔬果中的黄酮类化合物,在芹菜、洋甘菊和欧芹中含量较高,具有肠道靶向的抗炎作用。
其可调节肠道菌群、强化肠道屏障,从而减少LPS吸收;在高脂饮食诱导的肥胖模型中,补充芹菜素可显著降低全身LPS水平及相关低度炎症。
②菊粉(Inulin)
益生元纤维如菊粉可促进抑制LPS的共生菌生长,并增加短链脂肪酸(SCFAs)生成,从而修复肠黏膜。
在一项针对2型糖尿病女性的随机对照试验中,补充菊粉8周使血浆LPS较安慰剂下降27.9%,同时炎症因子和胰岛素抵抗显著改善。
这些效应主要归因于其对肠道菌群的调节和对紧密连接蛋白的增强,从而抑制LPS易位,表明膳食纤维是降低内毒素血症和炎症的可行策略。
③利福昔明
利福昔明是一种肠道特异性抗生素,针对革兰氏阳性和革兰氏阴性菌,且不进行全身吸收。通过重塑肠道微生物群,利福昔明可以降低内源性内毒素的产生。
在非酒精性脂肪性肝炎(NASH)患者中,28天的利福昔明治疗显著降低了血清内毒素水平(内毒素活性下降,P=0.03),同时肝酶和炎症标志物也有所改善。
④姜黄素
姜黄素可通过强化肠道屏障并解毒内毒素,减少LPS介导的炎症。在饮食诱导的代谢综合征啮齿动物模型中,姜黄素提高肠道碱性磷酸酶活性(去磷酸化并中和LPS),维持紧密连接结构,从而防止血浆LPS升高。
在高脂饮食的糖尿病大鼠中,姜黄素可使升高的血清LPS和TNF-α恢复至正常水平。这些作用与其重塑肠道菌群(增加有益菌)及直接抑制LPS诱导的肠道信号通路有关。初步人体研究亦支持其作为辅助干预,用于降低代谢疾病中的内毒素血症和炎症。
⑤膳食纤维的综合作用
膳食纤维不被人体消化,进入结肠后作为双歧杆菌、乳杆菌等革兰阳性有益菌的发酵底物,促进其增殖并相对降低革兰阴性菌比例,从而减少LPS生成。
有益菌发酵产生的短链脂肪酸具有抗炎作用并增强肠道屏障,降低LPS吸收,形成双重降LPS效应。其中丁酸盐既是能量来源,又可强化屏障功能,是膳食纤维降低LPS的重要机制之一。
6
调节肠道菌群,选择合适的益生菌
①从源头调整肠道菌群减少脂多糖产生
LPS由肠道革兰氏阴性菌产生;其比例升高会增加LPS生成。通过饮食调节促进革兰氏阳性有益菌生长、降低阴性菌比例,可从源头减少LPS产生并降低其循环水平,这种改变具有长期稳定性。
益生菌和益生元均有助于调节菌群,因此饮食干预是更为根本且可持续的策略。相比单纯依赖抗炎药物,从源头控制菌群更能长期维持LPS在正常水平,促进整体健康。
②施用以革兰氏阳性菌为主的益生菌
选择的益生菌应该以双歧杆菌、乳杆菌等革兰氏阳性菌为主,这些本身没有LPS细胞壁,不会给肠道额外增加LPS,同时抑制革兰氏阴性菌过度生长,减少总LPS产生。
避免选择含有大量革兰氏阴性菌的益生菌产品,这些会给肠道额外增加LPS,增加LPS负担,反而达不到降低LPS的效果。
7
抑制LPS诱导的炎症反应
①Omega-3脂肪酸
改变细胞膜结构与脂筏环境,影响TLR4信号复合体激活,并通过resolvins等介质促进炎症消退,从而减轻LPS炎症反应。
②小剂量阿司匹林
通过COX抑制及NF-κB通路调节发挥整体抗炎作用,同时抑制血小板聚集,降低LPS相关心血管风险(主要为系统性抗炎效应的一部分)。
8
减少脂肪组织LPS蓄积
LPS亲脂容易蓄积在脂肪组织中,脂肪组织质量越大,蓄积LPS总量越多,脂肪组织不断缓慢释放LPS进入循环,维持循环LPS持续低水平升高,减肥减少脂肪组织质量,LPS蓄积总量减少,释放进入循环的LPS减少,循环LPS水平下降。
减肥同时改善肠道菌群,减少革兰氏阴性菌比例,进一步减少LPS产生,多重机制共同降低循环LPS水平,因此肥胖症减少体重可以显著降低LPS水平。
9
不同LPS风险分层个体化干预策略
不同LPS风险程度需要不同强度干预策略,低风险维持健康生活方式,中风险饮食调整加针对性营养补充,高风险先排查继发性疾病针对性治疗,个体化干预更高效。
•低LPS风险:不需要特殊药物干预,维持低LPS饮食模式和健康生活方式,几个月复查一次即可,长期维持可以稳定保持低LPS。
•中度LPS风险:饮食调整基础上,针对性补充营养补充剂,比如益生元、益生菌、乳铁蛋白,根据是否存在屏障损伤选择修复屏障营养,3-6个月复查调整方案。
•显著LPS风险:先排查继发性疾病,常见继发性疾病是SIBO、牙周病、便秘,针对性治疗继发性疾病,治疗后继续生活方式维持。
根据风险分层选择不同干预强度,避免低风险过度干预浪费金钱扰乱菌群,高风险干预不足达不到效果,个体化分层干预平衡效果和安全性,更合理高效。
♥
很多人从未关注过脂多糖(LPS),也很少意识到它与常见慢性疾病之间的联系。通过本文的系统梳理,我们从结构、机制到疾病,再到干预路径,已经建立起一个相对完整的认知框架。
⑴脂多糖的基本特性
脂多糖由脂质A、核心多糖和O抗原构成,其中脂质A是主要的免疫活性结构。其物理化学性质较为稳定,一般灭菌手段难以完全去除其活性。
⑵代谢与清除路径
脂多糖主要来源于肠道菌群。正常情况下,肠道屏障可以限制其大量进入体内;进入循环后的LPS主要由肝脏清除。部分研究提示,脂肪组织在一定程度上也可参与LPS相关过程。
⑶致病机制
LPS可通过TLR4被机体识别,激活先天免疫系统,诱导TNF-α、IL-6等促炎因子释放。当这种激活处于长期低水平状态时,可对多组织产生慢性损伤。
⑷疾病关联
脂多糖升高与多种慢性疾病存在相关性,包括代谢综合征、2型糖尿病、非酒精性脂肪肝(NAFLD)、动脉粥样硬化、高血压、肥胖,以及部分神经系统疾病和自身免疫疾病等。但其作用通常是多因素共同参与的一部分。
⑸脂多糖升高的常见因素
高脂饮食、过量饮酒、吸烟、膳食纤维摄入不足、长期使用广谱抗生素,以及SIBO、牙周炎、便秘、慢性压力、睡眠不足和肥胖等,都可能通过不同路径影响脂多糖水平。
⑹检测与评估方式
脂多糖可以通过血浆检测进行评估,同时CRP等炎症指标可作为间接参考。结合肠道菌群检测,有助于从“产生—吸收—炎症反应”多个维度综合评估风险。
⑺干预基本原则
围绕三个核心方向展开:
•减少产生(调节菌群);
•减少吸收(修复肠道屏障);
•减少转运与炎症反应(饮食与系统状态调节)。
同时,对于SIBO、牙周炎等明确来源,应进行针对性处理,并结合个体情况进行分层干预。
脂多糖(LPS)是革兰氏阴性菌细胞壁的特有成分。在正常生理状态下,少量脂多糖进入循环,有助于维持基础免疫激活。
但当多种因素叠加,导致循环中LPS长期处于偏高水平时,机体会进入一种“慢性低度炎症状态”,这一状态被认为与多种慢性疾病的发生发展密切相关。因此,长期维持LPS在合理范围内,是慢性疾病预防与管理中一个值得关注的重要环节。
主要参考文献
Wassenaar TM, Zimmermann K. Lipopolysaccharides in Food, Food Supplements, and Probiotics: Should We be Worried? Eur J Microbiol Immunol (Bp). 2018 Aug 21;8(3):63-69.
Kim HS, Kim S, Shin SJ, Park YH, Nam Y, Kim CW, Lee KW, Kim SM, Jung ID, Yang HD, Park YM, Moon M. Gram-negative bacteria and their lipopolysaccharides in Alzheimer’s disease: pathologic roles and therapeutic implications. Transl Neurodegener. 2021 Dec 7;10(1):49.
Magdaleno F, Blajszczak CC, Nieto N. Key events participating in the pathogenesis of alcoholic liver disease. Biomolecules. 2017;7:pii:E9.28134813.
Gomes JM, Costa JA, Alfenas RC. Metabolic endotoxemia and diabetes mellitus: A systematic review. Metabolism. 2017;68:133–44.
Roth J, Blatteis CM. Mechanisms of fever production and lysis: lessons from experimental LPS fever. Compr Physiol. 2014;4:1563–604.
Tume R, El Sherbiny S, Bono R, Gautier T, Pais de Barros JP and Meroño T (2025) The balance between proinflammatory, “bad”, and immunomodulatory, “good”, lipopolysaccharide for understanding gut-derived systemic inflammation. Front. Immunol. 16:1588129.
Catorce MN, Gevorkian G. LPS-induced murine neuroinflammation model: main features and suitability for pre-clinical assessment of nutraceuticals. Curr Neuropharmacol. 2016
Laugerette F, Vors C, Peretti N, Michalski MC. Complex links between dietary lipids, endogenous endotoxins and metabolic inflammation. Biochimie. 2011;93:39–45
Neyen C, Lemaitre B. Sensing Gram-negative bacteria: a phylogenetic perspective. Curr Opin Immunol. 2016;38:8–17.
Candelli, M.; Franza, L.; Pignataro, G.; Ojetti, V.; Covino, M.; Piccioni, A.; Gasbarrini, A.; Franceschi, F. Interaction between Lipopolysaccharide and Gut Microbiota in Inflammatory Bowel Diseases. Int. J. Mol. Sci. 2021, 22, 6242.
Szentirmai, É., Buckley, K., Massie, A.R. et al. Lipopolysaccharide-mediated effects of the microbiota on sleep and body temperature. Sci Rep 14, 27378 (2024).
Citronberg JS, Curtis KR, White E, Newcomb PA, Newton K, Atkinson C, Song X, Lampe JW, Hullar MA. Association of gut microbial communities with plasma lipopolysaccharide-binding protein (LBP) in premenopausal women. ISME J. 2018 Jun;12(7):1631-1641.
Lin TL, Shu CC, Chen YM, Lu JJ, Wu TS, Lai WF, Tzeng CM, Lai HC, Lu CC. Like Cures Like: Pharmacological Activity of Anti-Inflammatory Lipopolysaccharides From Gut Microbiome. Front Pharmacol. 2020 Apr 30;11:554.
d’Hennezel E, Abubucker S, Murphy LO, Cullen TW. Total Lipopolysaccharide from the Human Gut Microbiome Silences Toll-Like Receptor Signaling. mSystems. 2017 Nov 14;2(6):e00046-17.
Apigenin Alleviates Obesity-Associated Metabolic Syndrome by Regulating the Composition of the Gut Microbiome.. Qiao Y, Zhang Z, Zhai Y, Yan X, Zhou W, Liu H, Guan L and Peng L. (Front. Microbiol. 12:805827. (2022))
Orange juice neutralizes the proinflammatory effect of a high-fat, high-carbohydrate meal and prevents endotoxin increase and Toll-like receptor expression.. Ghanim H, Sia CL, Upadhyay M, Korzeniewski K, Viswanathan P, Abuaysheh S, Mohanty P, Dandona P.. (Am J Clin Nutr. 2010 Apr;91(4):940-9.)
Oral spore-based probiotic supplementation was associated with reduced incidence of post-prandial dietary endotoxin, triglycerides, and disease risk biomarkers.. McFarlin BK, Henning AL, Bowman EM, Gary MA, Carbajal KM.. (World Journal of Gastrointestinal Pathophysiology. 2017;8(3):117-117.)
Effect of Probiotic Supplementation on Intestinal Permeability in Overweight and Obesity: A Systematic Review of Randomized Controlled Trials and Animal Studies.. DiMattia Z, Damani JJ, Van Syoc E, Rogers CJ.. (Adv Nutr. 2024 Jan;15(1):100162.)
Inulin controls inflammation and metabolic endotoxemia in women with type 2 diabetes mellitus: a randomized-controlled clinical trial.. Dehghan P, Gargari BP, Jafar-Abadi MA, Aliasgharzadeh A.. (Int J Food Sci Nutr. 2014 Feb;65(1):117-23.)
Efficacy of rifaximin on circulating endotoxins and cytokines in patients with nonalcoholic fatty liver disease.. Gangarapu, Venkatanarayanaa; Ince, Ali Tüzüna; Baysal, Birola; Kayar, Yusufa; Kiliç, Ulkanb; Gök, Özlemb; Uysal, Ömerc; Şenturk, Hakana.. (European Journal of Gastroenterology & Hepatology 27(7):p 840-845, July 2015.)
Rifaximin: beyond the traditional antibiotic activity.. Calanni, F., Renzulli, C., Barbanti, M. et al.. (J Antibiot 67, 667–670 (2014).)
Improvement of intestinal barrier function, gut microbiota, and metabolic endotoxemia in type 2 diabetes rats by curcumin.. Huang J, Guan B, Lin L, Wang Y.. (Bioengineered. 2021 Dec;12(2):11947-11958.)
谷禾健康
龋齿,俗称“蛀牙”,是在以细菌为主的多种因素作用下,牙齿硬组织被细菌代谢产生的酸逐渐溶解和破坏的过程,是一种常见的口腔疾病。其发生与口腔细菌密切相关,这些细菌如同潜伏的“隐形杀手”,悄然侵蚀牙齿。今天,我们将揭开龋病细菌学因素的神秘面纱,首先带大家认识导致龋齿的罪魁祸首——变异链球菌(Streptococcus mutans)。
变异链球菌(Streptococcus mutans),一种革兰氏阳性兼性厌氧菌,偶尔可在其他部位检测到,但主要定植于口腔,被视为龋齿的主要元凶之一。其能发酵多种糖类(膳食中的蔗糖、葡萄糖、果糖、乳糖等),主要产物是乳酸,酸的持续累积可导致牙釉质羟基磷灰石脱矿,从而引发并加重龋齿,这也是多吃糖更易蛀牙的原因。
编辑
<来源:谷禾健康口腔菌群检测数据库>
其关键毒力因子细菌素使其在早期牙菌斑中具备竞争优势,从而稳定定植于牙面;通过黏附蛋白与葡糖基转移酶(Gtfs)合成胞外多糖,增强附着并促进致密生物膜形成;同时凭借强产酸性与耐酸性共同推动龋齿发生。
同时,越来越多的动物实验和临床研究表明,变异链球菌的致病特性并不仅局限于牙齿损伤。其特性使其能在体液中规避免疫反应,既可附着于牙面,也可黏附血管内皮等组织,并诱发炎症反应,损害器官,参与系统性疾病的发生。已发现变异链球菌与心血管疾病、炎症性肠病、IgA肾病、非酒精性脂肪性肝炎以及肿瘤等多种疾病过程存在相关性。但因果关系尚未明确,还需要进一步剩余的临床研究。
本文将带你深入了解变异链球菌(Streptococcus mutans),并通过结合对变异链球菌的见解与针对生物膜的适当控制措施,为开发创新且有效的龋齿预防和治疗策略提供思路。
1
分类学与细胞形态
•分类:变异链球菌(Streptococcus mutans)属于厚壁菌门(Firmicutes)下链球菌科,链球菌属(Streptococcus)的物种。
•形态:细胞直径约为0.5-0.7μm,球菌,常成链、短链或成对排列;在致密生物膜中,可能表现出由细胞延长机制驱动的拉长或不规则形态,具有厚实的肽聚糖细胞壁和链球菌典型的磷壁酸,这些结构参与:黏附、免疫识别、生物膜稳定。
•革兰氏染色:革兰氏阳性菌(G⁺)。
•其他特征:无芽孢、无鞭毛(不具运动性)。
2
生长环境和生态位
•兼性厌氧菌:在需氧和无氧条件下都能生长,但偏好低氧生态位。
•温度:35~37°C。
•pH:对生长中性,但在酸性环境中(pH ~4)也能存活甚至保持代谢活跃。
•主要生态位:口腔牙面,特别是:咬合面窝沟、龋洞、牙菌斑。
•关键生态特征:变异链球菌很少以浮游形式存在,而是通过粘附蛋白和葡聚糖结合蛋白(Gbps)附着于牙釉质获得性膜及其他细菌;当蔗糖存在时,通过葡萄糖转移酶产生细胞外多糖(EPS),形成粘性基质以稳定生物膜结构。
生物膜中的转化速率可高于浮游形式多个数量级,促进水平基因转移和适应。
变异链球菌的生物膜形成
编辑
doi: 10.1128/microbiolspec.GPP3-0051-2018.
3
人群分布与定植
变异链球菌(Streptococcus mutans)在人类群体中广泛存在;定植与龋齿的形成密切相关。
•早期:多在儿童期“感染窗口”由照护者(多为母亲)传播,约2岁即完成定殖,学龄前及学龄期患病率进一步上升。
•成人:其可长期定殖于多数成年人,尤见于口腔卫生差或高糖摄入者。2025年一项系统综述/荟萃分析基于现代微生物组学证实,其存在及丰度与龋病显著相关。
•传播方式:垂直传播(母婴,如唾液接触)、水平传播(家庭成员间)。
4
代谢能力
•碳水化合物代谢(核心致病基础)
变异链球菌能发酵多种糖类(膳食中的蔗糖、葡萄糖、果糖、乳糖和淀粉衍生的寡糖),主要产物是乳酸。
变异链球菌的碳水化合物代谢
编辑
doi: 10.1128/microbiolspec.GPP3-0051-2018.
其中蔗糖在关键的双重作用中发挥作用:
1.通过糖酵解生成乳酸的底物;
2.通过葡萄糖转移酶和果糖转移酶合成细胞外多糖(EPS)的底物,产生不溶性葡聚糖促进牙齿釉质的附着和细胞间凝聚力,调节斑块扩散和养分分布的可溶性葡聚糖。
•产酸性
高糖解通量使碳水摄入后迅速产酸,将菌斑pH降至釉质脱矿临界值以下(约pH5.5)。
变异链球菌的酸应激耐受机制
编辑
doi: 10.1128/microbiolspec.GPP3-0051-2018.
•胞外多糖合成
核心酶:葡糖基转移酶(GTFs)
GtfB:促进细菌聚集;
GtfC:结合牙釉质;
GtfD:生成可溶性葡聚糖。
作用:
形成胞外多糖基质(EPS);
构建生物膜结构。
5
与其他细菌的互作
变异链球菌与口腔中多种菌群存在协同或拮抗相互作用,显著影响生物膜形成及致病性。
•与健康相关链球菌之间存在拮抗作用
一个典型的拮抗相互作用例子发生在变异链球菌与其他链球菌成员,如血链球菌(streptococcus sanguinis)和戈登链球菌(Streptococcus gordonii)之间。
具体来说,其他链球菌的一些成员分泌毫摩尔浓度的H2O2,这对变异链球菌具有高度抑制作用。另一方面,变异链球菌菌株不仅会产生对其他链球菌特异性的诱变剂,而且大多数菌株通常比其他物种更酸。这种拮抗关系在牙菌斑中变得更加明显,因此口腔共生链球菌(如血链球菌和戈登链球菌)的丰度(在健康牙菌斑内丰富)与变异链球菌(在龋齿病变中丰富)的丰度之间存在负相关关系。
•变异链球菌产生的乳酸可作为Veillonella碳源
虽然变异链球菌产生的乳酸对许多酸敏感的口腔共生菌的生长具有抑制作用,但乳酸却是口腔中一个流行的菌属韦荣氏球菌属(Veillonella spp.)的碳源。研究人员认为Veillonella可能起到“酸槽”的作用,防止牙齿生物膜达到极低的pH值。
这种营养互惠可能解释了韦荣氏球菌属与口腔中链球菌的密切关系,链球菌分泌乳酸作为碳水化合物发酵的废物。并且在双物种生物膜中,与单物种生物膜相比,变异链球菌和小韦荣氏球菌(veillonella parvula)形成独特的结构,对氯己定和其他抗菌药物的耐药性增强。
•变异链球菌可结合白色念珠菌增加致龋潜力
除细菌外,口腔亦常被酵母菌定植,其中白色念珠菌多见于口腔黏膜,并常与变异链球菌共存,在早期儿童龋中高丰度检出。
研究表明,变异链球菌GtfB可结合白色念珠菌表面甘露聚糖受体,增强其黏附与生物膜积累,从而提高致龋性;同时白色念珠菌产生的法尼醇可促进其胞外多糖合成。动物模型显示,两者共感染可显著增强生物膜致龋潜力,导致更严重的龋损。
•S.mutans与其他菌之间的相互作用(仅供参考)
促进:
Bacteroidales
Bacteroides
Odoribacter
Peptococcaceae
抑制:
Bifidobacterium
Coriobacteriales
Adlercreutzia
Collinsella
Porphyromonas
Prevotella
Clostridium
Clostridiales incertae sedis
Clostridiales Family XIII. Incertae Sedis
Blautia
Coprococcus
Dorea
Lachnospiraceae
Ruminococcaceae
Ruminococcus
Dialister
Campylobacteraceae
Erysipelotrichaceae
龋齿并不是一下子形成的,更像是一场发生在牙面微生态中的“慢性攻防战”。在这场战斗中,变异链球菌(S.mutans)扮演着关键角色。那么,变异链球菌究竟通过哪些具体机制主导这一过程?
研究发现,变异链球菌(S.mutans)的主要毒力由三大核心特性协同构成:
–粘附定植能力(Adhesion);
–强产酸性(Acidogenicity);
–耐酸性(Acid-tolerance)。
三者共同改变牙菌斑微生态平衡,使环境向致龋方向偏移,最终导致牙釉质脱矿,产生龋齿。
1
黏附与定植相关因子
S.mutans首先须稳定附着在牙面,才能发挥致病作用,而这一过程依赖多种关键因子参与。
•表面黏附蛋白(如 AgI/II, P1)
介导细菌与牙釉质获得性膜(pellicle)的初始结合。
•葡聚糖结合蛋白(Gbps)
促进细菌与已形成的多糖基质结合,增强细胞间聚集。
•葡糖基转移酶(Gtfs:gtfB、gtfC、gtfD)
是关键毒力因子
功能分化:
GtfC:结合牙面并启动葡聚糖合成;
GtfB:生成不溶性葡聚糖,促进菌体聚集;
GtfD:生成可溶性葡聚糖(作为底物/引物)。
在葡糖基转移酶的作用下,变异链球菌将蔗糖转化为葡聚糖,从而在细菌周围形成富含葡聚糖的胞外多糖基质(EPS),并以此为支架逐步构建起结构复杂、具有三维空间组织的生物膜。
2
生物膜—最关键的毒力因素
生物膜是变异链球菌最关键的毒力系统,其形成依赖于葡糖基转移酶(GtfB、GtfC、GtfD)催化蔗糖生成葡聚糖,并进一步构建胞外多糖基质(EPS),这一过程受vicRK、liaSR、brpA等基因调控。
从机制上看,当摄入蔗糖后,Gtf酶可将其转化为具有高度黏性的葡聚糖,相当于为细菌提供“胶水”,不仅使细菌牢固附着于牙面,还促进细菌之间的聚集,最终形成以细菌、胞外多糖和食物残渣为主要成分的牙菌斑生物膜。
生物膜形成周期
编辑
Fitri DK,et al.Front Oral Health.2025
•生物膜能提高细菌耐受性并形成局部酸性环境
生物膜结构具有重要的致病意义:一方面增强对机械清除的抵抗,使其不易被刷牙或唾液冲刷去除;另一方面限制抗菌物质的渗透,提高细菌耐受性;更关键的是,它能够滞留细菌代谢产生的酸,形成局部低pH微环境,从而促进牙釉质脱矿并推动龋齿发生。
3
产酸能力
•变异链球菌能够代谢糖并产生乳酸
变异链球菌具有高度活跃的糖代谢能力,其糖酵解通量显著高于许多口腔共生菌,能够迅速摄取并分解多种可发酵碳水化合物(尤其是蔗糖、葡萄糖和果糖)。
在这一过程中,细菌通过乳酸脱氢酶的催化作用,将糖代谢终产物丙酮酸进一步还原为乳酸,并持续向胞外释放。由于这一代谢过程发生迅速且效率极高,菌斑局部环境中的酸性物质会在短时间内大量积累,使pH值迅速下降,常可降至5.5以下这一牙釉质脱矿的临界阈值。
•pH降低使牙釉质发生脱矿,并逐渐发展为龋齿
当pH降低至该水平时,牙釉质中的羟基磷灰石晶体开始发生溶解,钙离子和磷酸根逐渐流失,导致牙体硬组织出现脱矿变化。若这一过程反复发生且未被唾液缓冲或再矿化机制有效逆转,便会逐步发展为早期白垩斑,最终形成不可逆的龋损。
变异链球菌导致龋齿形成的生化机制
编辑
doi: 10.1007/s13205-025-04227-3.
4
耐酸能力
变异链球菌不仅具有较强的产酸能力,还具备出色的耐酸性,这是其能够在致龋环境中持续生存并占据优势的关键。
•变异链球菌通过机制避免细胞内环境酸化,并占据主导生态位
首先,在酸性条件下,变异链球菌细胞膜上的 F₁F₀-ATPase 可主动将胞内过量的H⁺泵出细胞外,从而维持相对稳定的胞内pH,避免细胞内环境酸化对代谢过程的抑制。
其次,S. mutans能够通过调节细胞膜脂质组成,改变脂肪酸比例,使细胞膜通透性降低,从而减少外界酸性物质对细胞内部的侵入和损伤。
此外,在低pH应激条件下,该菌还可上调一系列应激蛋白(如GroEL等分子伴侣蛋白)的表达,这些蛋白有助于维持关键酶和结构蛋白的正确折叠与功能稳定,保障细胞在酸性环境中的正常生理活动。
正是依赖上述多重机制,变异链球菌能够在其他细菌难以耐受的低pH环境中持续存活并不断繁殖,从而在牙菌斑生态系统中逐渐占据主导地位。
5
细菌竞争与“生态操控”
变异链球菌在口腔生物膜中不仅依赖自身生长优势,还通过多种机制主动调控微生态环境,从而在菌群竞争中占据主导地位。
•能够产生细菌素抑制其他细菌
一方面,它能够产生细菌素,可直接抑制或杀灭周围竞争性细菌,减少资源竞争。另一方面,其通过群体感应系统感知自身密度变化,并协调调控相关毒力因子的表达,例如增强细菌素的产生、生物膜的形成以及应激反应,从而提高整体群体的适应性和竞争力。
此外,变异链球菌还通过其强大的产酸能力改变局部微环境,使菌斑pH持续降低。这样的酸性环境不利于多数口腔共生菌(通常为中性偏好菌)的生存,却有利于自身及其他耐酸菌的增殖,从而进一步强化其生态优势。
通过“直接抑制对手”(分泌细菌素)与“间接改变环境”(降低pH)这两种策略,变异链球菌不仅能够在复杂的口腔微生物群落中稳定定植,还能逐步排挤有益菌群,推动菌群向致龋方向演替。
龋齿是怎么一步步发生的?
(1)初始定植阶段
首先,在初始定植阶段,婴幼儿多通过母体传播获得变异链球菌(S. mutans),此外也可能通过共享餐具或共同食物等途径在日常接触中发生水平传播。
这些细菌借助表面黏附蛋白附着于牙面形成的获得性膜上,虽然此时尚未直接致病,但已在口腔内建立起“种子菌群”,为后续发展奠定基础。
(2)蔗糖驱动的生物膜建立
随着饮食中蔗糖的摄入,进入生物膜建立阶段。变异链球菌分泌葡糖基转移酶(Gtfs),将蔗糖转化为葡聚糖并形成胞外多糖基质(EPS),这种具有黏性的基质如同“胶水”,将细菌彼此黏连并牢固固定在牙面上,逐渐形成结构致密的牙菌斑生物膜。
(3)酸性微环境形成
在此基础上,若频繁摄入碳水化合物,细菌通过高效发酵迅速产生乳酸,导致局部酸性物质积累。同时,EPS基质会限制酸的扩散,使其滞留于生物膜内部,致使局部pH持续下降,甚至低于5.5这一牙釉质脱矿的临界值,从而形成有利于脱矿的酸性微环境。
(4)菌群“变坏”(生态失衡)
当环境酸化到一定程度后,进入关键的生态选择阶段。原本占优势的酸敏感菌逐渐被抑制甚至淘汰,而耐酸性更强的细菌,如变异链球菌和乳杆菌(Lactobacillus),则得以富集并占据主导地位,使菌群结构由“健康型”转变为“致龋型”。
(5)牙体脱矿,开始“溶解”
牙齿发生“溶解”的本质是牙釉质的脱矿过程。牙釉质的主要无机成分为羟基磷灰石,其化学式为 Ca₁₀(PO₄)₆(OH)₂。在酸性环境中,尤其当局部pH降低至临界值以下时,这种晶体结构会逐渐被破坏并发生溶解,导致钙离子和磷酸根从牙釉质中不断流失。
在临床表现上,这一过程的早期通常表现为白垩斑,即牙面出现失去光泽的白色不透明区域,提示釉质已发生初步脱矿但表面尚未破坏。如果酸性环境持续存在且未得到有效干预,脱矿将进一步加重,最终导致釉质表面结构塌陷,形成实质性缺损,逐渐发展为龋洞。
(6)生物膜成熟与龋洞形成
随着时间推移,生物膜逐渐成熟,其结构更加复杂致密,对机械清除和抗菌剂的抵抗能力显著增强。同时,在反复进食与代谢过程中,菌斑pH呈现周期性波动,但整体维持在偏低水平,使脱矿过程反复发生。
编辑
并且牙釉质结构被不断破坏,最终出现实质性缺损,进而暴露下方的牙本质,并逐渐形成可见的龋洞。如果病变进一步发展且未得到及时处理,细菌及其代谢产物可侵入牙髓组织,引发牙髓感染,临床上常表现为明显的牙痛等症状。
小编总结
变异链球菌(Streptococcus mutans)致龋的核心在于其多种因子的协同作用:
1.依赖黏附蛋白与葡糖基转移酶(Gtfs)合成胞外多糖,增强对牙面的黏附并促进致密生物膜形成;
2.具备强大的产酸能力,可快速发酵碳水生成乳酸;
3.具有良好的耐酸性,能够在低pH环境中持续生存与代谢;
4.还可通过细菌素及群体感应机制抑制竞争菌。
在这些因素共同作用下,菌斑内酸性持续累积,导致牙釉质羟基磷灰石脱矿,最终引发并推动龋齿的发生与进展。
!
哪些人更容易S.mutans过高?
①高频摄入高糖人群
特点:经常吃甜食、含糖饮料(如零食、奶茶、碳酸饮料)。
机制:提供持续底物 → S. mutans通过糖酵解产生乳酸,竞争优势增强。
②夜间进食/睡前不清洁人群
③口腔清洁不佳人群
刷牙或口腔清洁做的不到位,生物膜未被破坏。牙面形成“封闭微环境”,有利于S.mutans定植和繁殖。
④正畸患者(戴牙套人群)
特点:托槽、弓丝增加滞留位点。
机制:更易形成局部生物膜、清洁难度显著增加。
⑤唾液功能低下人群
常见人群:
-老年人;
-服用抗胆碱药、抗抑郁药者;
放疗患者。
机制:
-唾液减少 → 缓冲能力下降;
-再矿化能力降低;
-抗菌成分减少。
一项研究以香港12–15岁青少年为对象,探讨脂肪状态、唾液理化特性及炎症生物标志物与两种主要致龋菌(变异链球菌和远源链球菌)之间的关系。结果显示,超重/肥胖及中心性肥胖与唾液中变异链球菌丰度显著升高相关,同时伴随唾液流速降低和抗菌蛋白sPLA2-IIA水平下降,但对远源链球菌无显著影响。研究提示肥胖可能通过影响唾液分泌与免疫防御机制,进而增加龋病风险相关菌群。
⑥长期口呼吸人群
机制:口腔干燥 → 局部微环境改变,有利于S.mutans富集。
⑦口腔环境与牙体结构异常者
如:深窝沟、牙列不齐,有利于S.mutans黏附与生物膜形成。
或是已有龋齿或修复体人群,因为粗糙表面增加附着位点,易形成局部“菌库”。
⑧微生态失衡人群
正常菌群减少,失去对S.mutans的竞争抑制。
⑨行为与生活方式相关人群
吸烟者:改变口腔菌群结构;
压力大/作息紊乱人群:影响免疫与唾液分泌;
不定期口腔检查者:无法早期干预。
变异链球菌(Streptococcus mutans)是导致龋齿的主要致病细菌。然而,越来越多的动物实验和临床发现表明,变异链球菌的特征并不仅限于对牙齿组织的损害。
变异链球菌不仅能够在局部诱发炎症反应,还可能在特定条件下进入血液循环,并进一步对全身多个器官和系统产生潜在影响和损害,例如可作用于血管内皮,并与IgA肾病、炎症性肠病、非酒精性脂肪性肝炎以及肿瘤等多种疾病过程存在相关性。
变异链球菌引起的多器官损伤
编辑
Fang Y,et al.Front Microbiol.2024
1
S.mutans的促炎机制
变异链球菌表面蛋白质抗原(PA)有潜力刺激TNF-α、IL-1β和IL-6的产生。
•TNF-α和IL-1β的诱导
在巨噬细胞中,S.mutans通过激活信号通路ERK/p38/JNK和NF-κB,分别通过TLR2(Toll样受体2)和TLR4(Toll样受体4)来诱导TNF-α和IL-1β的产生。
NF-κB激活转录反应,促进前IL-1β的合成,第二条信号通路通过炎症小体激活半天冬酶-1依赖的IL-1β成熟和分泌。
TNF-α可启动细胞因子级联反应,增强血管通透性并招募巨噬细胞和中性粒细胞至感染部位。IL-1β由激活的单核吞噬细胞产生,依赖先天免疫介导炎症反应,具有促进吞噬细胞活化、抗体生成及T细胞极化等多种生物学作用。
•通过产生IL-6调控炎症
IL-6及其可溶性受体是调控中性粒细胞和单核细胞募集的关键介质。研究表明,葡糖基转移酶(GTFs)在缺乏葡萄糖时虽不促进感染,但可调节炎症反应;在急性炎症中,GTFs是诱导IL-6的重要调控蛋白,并可能在全身感染过程中于脾脏及周围病灶刺激IL-6产生。
临床研究发现,心内膜炎各阶段血清IL-6水平均显著升高,而其他细胞因子变化不明显,提示持续的IL-6激活可能参与心肌损伤。此外,作为革兰阳性菌,变异链球菌可通过其胶原结合黏附分子抑制经典补体途径。
2
S.mutans在心血管疾病中的作用
变异链球菌进入血液后可对多器官和系统造成损害,其中对心血管系统的致病机制研究最为明确。其胶原结合蛋白(CBP)可与I型胶原结合,损伤血管并诱发脑出血、感染性心内膜炎等心血管疾病。
在多项临床和动物研究中,变异链球菌常被检出于心脏瓣膜和动脉粥样硬化斑块中,其在菌血症及血管损伤中的作用已得到证实。
•可能加速诱导动脉粥样硬化
动脉粥样硬化(AS)是一种在中动脉或大动脉壁形成脂质斑片状沉积的疾病,导致血流减少或受阻。变异链球菌通过对血管内皮细胞的损伤作用加速了AS的诱导,这在受损的内皮细胞中更为明显。
编辑
目前认为,人主动脉内皮细胞(HAEC)感染变异链球菌后显著上调细胞内TLR2和NOD2(核苷酸结合寡聚结构域蛋白)表达,导致心血管疾病相关的促炎细胞因子(IL-6、IL-8、MCP-1)产生增加。
体外研究发现,在S. mutans感染后,HAECs中细胞DMBT1(在恶性脑瘤1中缺失,被认为是肿瘤抑制基因)表达上调。变异链球菌对DMBT1敲低HAEC更具侵袭性,导致细胞因子产生增加。
•感染性心内膜炎
当S. mutans到达受损的心内皮后,可与暴露的胶原蛋白结合,活化血小板亦通过vWF参与黏附。可能通过与纤维蛋白原相互作用促进微生物聚集,从而诱发感染性心内膜炎(IE)。
•S.mutans还有概率增加脑微出血
小鼠模型表明,变异链球菌与脑出血加重相关,该情况为感染性心内膜炎的并发症之一,发生率约为10%。横断面研究显示其可增加脑微出血(CMBs),后续纵向研究进一步证实其与高血压性脑出血及深部CMBs相关,这两者是穿支动脉粥样硬化的主要出血表现。
编辑
影响因子:7.19
其可能机制包括:随年龄增长血脑屏障通透性升高、内皮完整性下降;慢性高血压导致小血管结构改变、血脑屏障破坏及I型胶原沉积。
上述变化释放血管相关因子,促进变异链球菌与暴露的胶原结合并黏附于小穿支动脉。随后中性粒细胞浸润及炎症反应增强,增加血脑屏障通透性并释放髓过氧化物酶MPO-16和基质金属蛋白酶MMP-9,加重内皮损伤。
此外,细菌表面负电荷可抑制血小板与胶原的结合,促进局部出血;在衰老和高血压背景下,深部血管损伤进一步加剧,最终导致脑出血和出血性卒中。
3
S.mutans与炎症性肠病
结肠炎的加重可能是由肝脏的变异链球菌感染引起的,变形链球菌感染期间肝脏释放的IFN-γ是各种炎症级联反应的第一步。
编辑
•变异链球菌感染促进炎症细胞因子释放
现有数据显示,促炎细胞因子(TNF-α、IL-1β和IL-6)以及免疫抑制性IL-10缺乏是肠道炎症的标志物。IL-6是溃疡性结肠炎患者炎症区域的主要细胞因子,其浓度与内镜下疾病严重程度评分相关。
4
S.mutans与IgA肾病
研究已证实扁桃体免疫与肾小球肾炎密切相关,部分病原体可通过影响扁桃体免疫参与IgA肾病的发生。感染等粘膜变化可以激活先天免疫系统,加剧现有的IgA,并促进血尿等疾病表现。
•S.mutans可诱导肾小球炎症
较高浓度的IV型胶原可促进变异链球菌聚集。研究表明,该菌可诱导兔肾小球和肾小管严重炎症,并在大鼠中引发IgA肾病样肾小球肾炎。Cnm阳性菌株与蛋白尿升高及IgA肾病加重相关,但Cnm蛋白本身对肾脏无直接损伤。
编辑
影响因子:3.998
其在黏膜组织中与IgA的免疫反应可能导致IgA1糖基化缺陷,而该缺陷是IgA肾病的重要发病机制。
5
S.mutans与非酒精性脂肪肝炎
“二次打击理论”被广泛认为是非酒精性脂肪肝炎(NASH)发生的机制:首先是因为吃得过多、代谢紊乱,出现胰岛素抵抗,脂肪在肝脏里堆积,形成“脂肪肝”;然后在这个基础上,氧化应激、脂质过氧化和线粒体功能受损等因素进一步加重损伤,促使肝脏发生炎症和纤维化,最终发展为NASH。
•携带并表达Cnm蛋白的S.mutans会加重肝损伤
与Cnm+ /PA-变异株S.mutans株相比,Cnm+ /PA +株在小鼠中表现出较高的致病性,导致NASH加重。Cnm帮助变异链球菌在肝细胞上附着,避免脂肪酸积累。Cnm和蛋白质抗原(PA)分别可能促进S. mutans细胞与肝细胞的结合,分别在无脂肪酸和结合后。
注:Cnm是一种“胶原结合蛋白”,能让细菌黏附在人体的胶原组织上(比如血管、心脏瓣膜等)。
在细菌细胞表面表达PA和Cnm的S. mutan会定位于肝脏并附着于肝细胞上,导致与氧化应激相关的炎症细胞因子增加,如IFN-γ和金属硫黄素。这导致肝细胞再次受损,加重NASH。越来越多的证据支持IV型胶原蛋白与Cnm+ S.mutans之间的临床相互作用。
6
S.mutans与肿瘤相关
变异链球菌感染会增加肿瘤侵袭性,并与疾病控制不佳有关。
•变异链球菌增加IL-6促进口腔癌的发展
在口腔鳞状细胞癌小鼠模型中,变异链球菌通过增加IL-6的产生促进口腔癌的发展和进展。变异链球菌还能够通过上调IL-8、降低血管内皮钙粘蛋白表达和增强细胞间粘附分子,诱导血管炎症并破坏血管屏障,从而促进肿瘤细胞渗出并向内皮迁移。
•S.mutans可能通过血栓形成促进肿瘤转移
血管内皮受损导致脑出血、感染性心内膜炎和动脉粥样硬化。变异链球菌可诱导白介素上调,这与其血管损伤共同可能导致原发肿瘤的血管转移。
编辑
变异链球菌在龋齿的发生和发展中具有关键作用,因此,制定有效策略以抑制变异链球菌生物膜形成,对于预防龋齿和促进口腔健康至关重要。
传统预防龋齿的方法
•饮食控制
减少高频摄入糖(尤其蔗糖);
避免“少量多次”吃甜食(比总量更重要);
餐后及时清洁口腔。
•正确口腔卫生习惯
每天刷牙≥2次(含氟牙膏);
使用牙线或间隙刷;
睡前刷牙尤为关键。
•定期口腔检查
龋齿是一个可逆→不可逆过程:
早期:白垩斑(脱矿)—可逆;
中期:釉质破坏;
晚期:牙本质龋—不可逆。
检查频率
普通人:6–12个月;
高风险人群(高糖饮食/正畸/儿童):3–6个月。
•窝沟封闭(儿童关键措施)
磨牙窝沟深,易滞留食物和菌斑;使用封闭剂封闭磨牙窝沟,有助于阻止菌斑滞留。
•专业洁治
包括:超声洁治、手工刮治。
作用:去除牙石、成熟菌斑。
除了传统的治疗方法外,现在已开发出一系列创新的抗菌膜策略,针对去除生物膜展现出有前景的应用。包括抗菌肽、益生菌、纳米颗粒、先进的物理方法(如非热等离子体和光动力疗法)以及噬菌体疗法。
抗变异链球菌生物膜策略
编辑
Gao Z,et al.Microbiol Res.2023
1
抗菌肽
长期广泛使用抗菌剂(如氯己定和三氯生)预防和治疗龋齿,可能促进细菌耐药性(AMR)的产生并扰乱口腔微生态。同时,牙齿生物膜通过其细胞外多糖(EPS)基质为细菌提供保护,限制抗菌剂渗透,削弱治疗效果。
•抗菌肽能够有效减少生物膜,并不易产生耐药性
近年来,抗菌肽(AMPs)被视为替代传统抗生素的潜在策略。AMPs是来源广泛的小分子碱性多肽,具有广谱杀菌活性和抑制生物膜形成的能力。其主要通过破坏细胞膜、形成跨膜孔道、干扰细胞内分子以及抑制细胞壁、核酸和蛋白质合成发挥作用,同时还能抑制细菌初始黏附和调控相关基因表达。
由于作用机制多样,细菌较难产生耐药性。研究表明,人β-防御素-3(HBD3)对多物种口腔生物膜的抗菌效果优于氢氧化钙和氯己定,并显著减少生物膜量。此外,催化素、防御素和组氨素等天然抗菌肽也被证实具有抗菌和抗生物膜作用。
不过尽管AMPs具有优势,其临床应用仍受限于稳定性差(易被蛋白酶降解)和生产成本高。为此,研究正致力于开发合成肽及其工程改造以提升稳定性和应用性。
2
益生菌
益生菌(如乳酸杆菌、双歧杆菌和枯草芽胞杆菌(Bacillus subtilis))传统用于多种全身疾病的防治,但同时研究也发现其可通过竞争黏附位点或与浮游变异链球菌共聚抑制定植,并通过产生有机酸、过氧化氢、细菌素和表面活性物质发挥抗菌与抗生物膜作用。
•植物乳杆菌等益生菌能抑制生物膜形成并降低相关致病蛋白表达
研究表明,益生菌及其衍生形式(如合成生物制剂、后生物和副益生菌)在生物膜相关口腔疾病中具有良好应用前景。例如,特定菌株可显著抑制S.mutans生物膜形成并下调gtf、ftf、brpA及群体感应相关基因表达;Lactobacillus plantarum在动物模型中表现出优于氯己定的抗菌效果,并可调节口腔菌群结构。
合成组合(如胶原肽联合L. rhamnosus)可破坏生物膜结构并降低胞外多糖生成;细菌裂解物则通过抑制MAPK和NF-κB通路发挥抗炎及抗生物膜作用,但对成熟生物膜清除有限。此外,来源于乳酸杆菌的脂磷壁酸可干扰蔗糖代谢并抑制多菌种生物膜形成。除乳酸杆菌外,枯草芽胞杆菌通过高效代谢糖醇增强对S.mutans的抑制作用。
总体而言,益生菌干预可通过调节口腔微生态及饮食相关代谢过程,降低龋病风险。
3
噬菌体疗法
噬菌体是感染细菌并破坏其代谢、最终导致细胞裂解的病毒。其具有高特异性、对共生菌影响小、天然低毒且不依赖耐药机制,因此被视为对抗耐药病原体的有前景策略。
噬菌体还可通过编码酶降解生物膜细胞外多糖、破坏细胞外基质,从而抑制生物膜形成,被认为是干预变异链球菌生物膜的重要替代方法之一。
•一些噬菌体可抑制变异链球菌生长及生物膜形成
近期研究发现多种针对变异链球菌的新型噬菌体具有良好的抗生物膜潜力。例如,从人类唾液中分离的ɸAPCM01可抑制其生长、生物膜代谢活性及活菌数量。通过基因工程使变异链球菌表达噬菌体T4 RNA连接酶1,也可显著降低生物膜量并破坏胞外多糖结构。
另一种口腔来源噬菌体SMHBZ8因强溶菌活性,在体外及小鼠模型中均能预防龋损形成。此外,溶菌性噬菌体在抑制生物膜相关基因表达方面优于细菌素,且二者联合应用并未优于单独使用。
4
纳米粒子
纳米颗粒因其固有抗菌特性,已成为对抗细菌感染和耐药性的有力工具,并被广泛应用于口腔生物膜治疗与药物递送。
•许多金属纳米粒子具有抗菌和抗生物膜作用
研究表明,多种金属及金属氧化物纳米颗粒(如金、银、铜、钛、铁等)均具有抗菌和抗生物膜作用,其机制包括破坏细胞壁、抑制胞外多糖或群体感应、产生活性氧(ROS)以及干扰DNA和蛋白质功能。
例如,银纳米颗粒(AgNPs)在龋病及健康人群的菌斑样本中均表现出显著抗菌效果,且粒径越小(如5.2 nm)活性越强,与性别或龋齿状态无显著相关性。
近年来,通过与其他材料复合以增强效果成为趋势,如由海藻酸钠/高岭土/AgNPs构建的纳米复合材料可完全抑制S. mutans生物膜内细菌活性,其作用主要源于AgNPs增加膜通透性并破坏细胞结构。
需要指出的是,尽管纳米颗粒在龋齿局部治疗中取得进展,其在口服生物膜治疗中的安全性仍是关键问题。临床应用前需充分评估其潜在毒性,包括体外细胞毒性和体内动物实验,以确保纳米技术疗法的安全性。
5
非热等离子体
传统机械清除虽可去除大部分牙菌斑和微生物,但口腔微生态可迅速恢复并促进细菌再生。非热等离子体(NTP)为抑制变异链球菌生物膜提供了新的解决方案。
•非热等离子体具有去除牙菌斑生物膜的前景
NTP由带电粒子、自由基及活性氧等活性成分组成,具有显著杀菌能力,可通过不同电压作用于气体产生。其特点是电子温度高(约10⁴ K)而离子温度接近室温,使整体温度较低。作为一种物理方法,NTP能够有效破坏并穿透生物膜,在牙菌斑去除中展现出良好应用效果。
NTP可显著改变生物膜代谢,增强TCA循环和整体代谢活性,使变异链球菌对抗生素和氧化应激更敏感;在大鼠模型中亦降低了龋病发生率和严重程度,但长期处理在临床上可行性有限。
6
光动力治疗
抗菌光动力疗法(PDT)因在治疗耐药感染和清除生物膜方面的潜力,成为有前景的生物膜干预手段。
其机制为光敏剂(如卟啉、邻苯二氮衍生物)在特定波长光照下转化为激发三重态,通过能量传递产生活性氧(ROS),进而氧化损伤蛋白质、脂质和多糖等,导致微生物死亡。
•光动力疗法可以减少致龋菌并降低耐药性风险
PDT疗效取决于光照条件、光敏剂类型及氧气供应。其多靶点作用降低了耐药性发生风险,支持其作为传统抗生素的替代方案。此外,PDT具备高效、无创、组织选择性强及环境友好等优势,在口腔医学中的应用前景广阔。
多项研究表明,光动力疗法(PDT)在体内去除生物膜方面具有显著潜力。经MPP-Ce6介导的PDT治疗后,致龋菌数量降至约10%,龋损数量和严重程度均明显降低。此外,快速交联水凝胶可在牙面形成涂层,按需释放ROS以清除生物膜,同时实现牙齿美白且不显著损伤牙釉质和牙龈组织。
主要参考文献
Fang Y, Chen X, Chu CH, Yu OY, He J, Li M. Roles of Streptococcus mutans in human health: beyond dental caries. Front Microbiol. 2024 Dec 19;15:1503657.
Gao Z, Chen X, Wang C, Song J, Xu J, Liu X, Qian Y, Suo H. New strategies and mechanisms for targeting Streptococcus mutans biofilm formation to prevent dental caries: A review. Microbiol Res. 2023 Oct 14;278:127526.
Lemos JA, Palmer SR, Zeng L, Wen ZT, Kajfasz JK, Freires IA, Abranches J, Brady LJ. The Biology of Streptococcus mutans. Microbiol Spectr. 2019 Jan;7(1):10.1128/microbiolspec.gpp3-0051-2018.
Thayumanavan T, Harish BS, Subashkumar R, Shanmugapriya K, Karthik V. Streptococcus mutans biofilms in the establishment of dental caries: a review. 3 Biotech. 2025 Mar;15(3):62.
Fitri DK, Tuygunov N, Wan Harun WHA, Purwasena IA, Cahyanto A, Zakaria MN. Key virulence genes associated with Streptococcus mutans biofilm formation: a systematic review. Front Oral Health. 2025 Aug 26;6:1654428.
Bowen WH, Koo H. Biology of Streptococcus mutans-derived glucosyltransferases: role in extracellular matrix formation of cariogenic biofilms. Caries Res. 2011;45(1):69-86.
Yu L, Hong Y, Maishi N, Matsuda AY, Hida Y, Hasebe A, Kitagawa Y, Hida K. Oral bacterium Streptococcus mutans promotes tumor metastasis through thrombosis formation. Cancer Sci. 2024 Feb;115(2):648-659.
Krzyściak W, Jurczak A, Kościelniak D, Bystrowska B, Skalniak A. The virulence of Streptococcus mutans and the ability to form biofilms. Eur J Clin Microbiol Infect Dis. 2014 Apr;33(4):499-515.
Wasfi R, Abd El-Rahman OA, Zafer MM, Ashour HM. Probiotic Lactobacillus sp. inhibit growth, biofilm formation and gene expression of caries-inducing Streptococcus mutans. J Cell Mol Med. 2018 Mar;22(3):1972-1983.
Deng Q, Wong HM, Peng S. Effect of adiposity status on salivary Streptococcus mutans and Streptococcus sobrinus. Oral Dis. 2025 Oct;31(10):2943-2953.
Lu C, Zhang S, Hong G. Comparative effectiveness of probiotics, prebiotics, synbiotics, and postbiotics in preventing dental caries: a meta-analysis from an oral microbiota modulation perspective. BMC Oral Health. 2026 Jan 27;26(1):342.
谷禾健康
维生素K是一种对身体功能至关重要的脂溶性维生素。它们被认为是人类产生多种参与凝血和钙稳态蛋白质的重要辅因子,所以又叫凝血维生素。
天然存在的维生素K主要分为两类:维生素K1(叶绿醌)和维生素K2(甲萘醌)。尽管同属维生素K,但它们之间有不少差异。
维生素K1主要存在于绿色蔬果中,K2存在于发酵食品或由肠道细菌产生。微生物K2通常半衰期更长,更容易在血清中积累,且其在肝外的血液分布范围更广,生物利用度更高。
并且维生素K2除了常规的凝血作用外,研究发现其可能还有益于心血管健康、改善骨质疏松、对肾病有帮助、或预防关节炎、改善血糖控制,并可调节免疫与神经认知,甚至具一定抗癌潜力。
维生素K2(主要为MK-7和MK-4)通过γ-羧基化(γ-carboxylation)机制激活两类关键蛋白:骨钙蛋白(Osteocalcin, OCN)和基质Gla蛋白(Matrix Gla-protein, MGP)。前者驱动钙沉积于骨基质,提高钙离子的结合力,使活化的OCN能够有效捕获血液中的钙离子并将其整合到骨矿物质中;后者则阻止钙在血管和软组织中的病理性沉积,减少血管异常钙沉积、降低心脑血管健康风险。
值得注意的是,维生素K2的内源性合成与肠道菌群状态密切相关,肠道益生菌(如乳酸菌、双歧杆菌,芽孢杆菌属等)是K2的主要内源合成者,其健康状态直接影响K2的体内浓度、肠道对外源K2的吸收利用效率,以及钙、维生素D等其他营养物质的生物利用度。抗生素使用、高脂高糖饮食、肠道炎症等因素导致的菌群失调会显著降低益生菌数量,进而导致K2合成下降,使得即使补充充足的钙和维生素D,其骨矿化效率仍然有限。
本文旨在从分子生物学、营养代谢和菌群微生态的多维度,系统阐述维生素K2的生理机制、吸收利用和代谢过程,阐明肠道菌群与K2的协同作用机制,并进一步介绍了从补给一饮食一菌群生态位层面的综合改善干预预防措施。
什么是维生素K?
维生素K(Vitamin K)又叫“凝血维生素”,因为它传统上最常与凝血相关:维生素K参与凝血相关蛋白的成熟激活(羧化),缺乏时会影响凝血功能。维生素K是一类脂溶性的小分子营养素,其最早于1929年由丹麦化学家达姆从动物肝和麻子油中发现并提取。
↘ K1、K2天然存在且为脂溶性
维生素K包括K1(叶绿醌)、K2(甲基萘醌)、K3(甲萘醌)、K4(甲萘氢醌)等几种形式,其中K1、K2是天然存在的,属于脂溶性维生素;而K3、K4是通过人工合成的。
这四种维生素K的化学性质都较稳定,能耐酸、耐热,正常烹调中只有很少损失,但对光敏感,也易被碱和紫外线分解。
虽然维生素K1和维生素K2同属于维生素K家族,并且都属于天然存在的营养成分,但它们在很多方面仍然直接存在着差异;这些不同并不只是来源层面的区别,而是会进一步体现在它们在体内的分布、可利用性以及由此带来的生理功能表现上。
注:本文这里主要介绍维生素K1和K2。
▸ 来源差异
↘ K1主要存在于绿色蔬果中
维生素K1主要存在于绿叶蔬菜、植物油和部分水果中(菠菜、卷心菜、羽衣甘蓝、牛油果),是饮食中维生素K的主要来源。
↘ K2存在于发酵食品或由肠道细菌产生
维生素K2存在于动物性和发酵食品(纳豆、奶酪、酸菜)中,或由人体肠道细菌产生。
维生素K1和K2的膳食来源
doi: 10.3390/ijms20040896.
▸ 结构差异
维生素K1含有一个由4个异戊二烯基单元构成的植酸侧链。
而维生素K2含有一个不饱和脂肪族侧链,并带有可变数量的异戊二烯基单元;丙烯基单元的数量对应不同的甲萘醌类型,包括短链的甲萘醌-4(MK-4)以及长链的MK-7、MK-8和MK-9。
其中,“n”越大代表侧链越长,从而显著影响其理化性质并进一步影响体内行为(如吸收、分布与停留时间)。
维生素K家族的化学结构
Zhang T,et al.Foods.2024
▸ 生物利用是关键差异
↘ K1主要分布在肝脏、K2分布更广泛
维生素K1和K2均为脂溶性,可与膳食脂肪和胆汁吸收。但它们在组织中的分布有所不同。肝脏、心脏和胰腺中维生素K1水平较高,但大脑、肾脏和肺部的浓度较低。
相较之下,维生素K2可存在于所有组织,但在肝脏、心脏和肺部的浓度较低。其长链衍生物可重新分布至循环系统,并用于肝外组织,如骨骼和血管。MK-4在大脑、肾脏和胰腺中的水平较高或接近K1,且其总体水平高于K1。
↘ 维生素K2半衰期更长,生物利用度更高
微生物K2(尤其是长链MK-7/MK-9)通常半衰期更长。一项比较维生素K1与MK-7的研究显示,MK-7半衰期可达68小时,而K1仅为1–2小时。
因此,维生素K2更容易在血清中积累,且其在肝外的血液分布范围更广,能更好地到达骨骼和血管等组织。相比之下,维生素K1从循环中清除更快,更易在肝脏中积累,并通过尿液和胆汁排出。
维生素K的生物利用度和生物分布
doi: 10.3390/ijms20040896.
研究发现,MK-7吸收效率和生物利用度最高。无论是摄入蔬菜来源的维生素K1,还是摄入富含K2的食物来源MK-7,二者在摄入后2小时内均可迅速吸收;但餐后血清中MK-7浓度约为K1的10倍。
同时,K1的空腹血浆浓度在个体间差异显著,且其吸收低于MK-4以及更长链的K2(如MK-8、MK-9)。长链维生素K2(尤其MK-7与MK-9)在循环中的半衰期更长,因此在循环中可被肝外组织更长时间利用。
不过,并非所有维生素K2都同样高效:MK-4的生物利用度并不一定对应给药后血清浓度升高;而MK-7给药可使血清MK-7水平在数天内持续升高,从而更好地反映并促进体内维生素K水平。
▸ 功能意义
两者均是维生素K依赖蛋白(凝血因子、骨钙素、基质Gla蛋白)γ羧化的辅因子。
K1:以肝脏凝血作用为主;
K2(尤其MK-7):更有效地激活肝外蛋白。现有证据提示其对骨骼健康和血管钙化可能有益,并被用于研究其在心血管、代谢及炎症相关疾病中的作用。
维生素K2如此重要,是因为它在人体内发挥多种关键作用,其中最为人熟知的是它作为维生素K依赖性凝血因子的激活辅因子。
近几十年的研究显示,维生素K2可能通过参与组织矿化、炎症、氧化以及年龄相关疾病过程发挥保护作用,从而为其在未来临床实践中的应用提供新的方向。
目前,维生素K2在心血管疾病、骨骼发育与骨折、慢性肾病以及某些癌症中的作用已较为明确;同时,越来越多的证据提示其在肝病、免疫功能、神经系统疾病和肥胖等方面也可能具有更广泛的作用。
对于凝血功能至关重要
维生素K是四种凝血蛋白(凝血酶原、转变加速因子、抗血友病因子和司徒因子)在肝脏内合成必不可少的物质,对γ-羧基谷氨酸的合成具有辅助作用。如果缺乏维生素K,则肝脏合成的上述四种凝血因子均为异常蛋白质分子,催化凝血作用的能力将大大下降。
维生素K促凝血和抗凝因子
Mladěnka P,et al.Nutr Rev.2022
维生素K2对心血管疾病有益
血管钙化是一个主动过程,推动心血管疾病发生,是全球主要死因之一。维生素K2依赖的蛋白质能够激活保护机制,抑制血管钙化发展。
↘ 维生素K2可以降低血管钙化风险
以MK-7形式存在的维生素K2,在健康与患病人群队列多项试验中表现出对钙化形成的长期保护作用;多项研究亦提示心血管疾病总体发生风险降低。甚至在健康人群补充后,也观察到动脉硬化的倒退与血管弹性的改善。
维生素K2的作用机制
编辑
doi: 10.1136/openhrt-2021-001715.
这些蛋白通过维生素依赖性羧化被激活。动脉粥样硬化斑块中识别的激活基质GLa蛋白可能抑制钙沉淀与软组织钙化。在一项前瞻性人群研究(LOE-A)中,纳入4807名基线无心肌梗死受试者并随访7年:维生素K2摄入量最高组相较最低组,冠心病风险显著降低。
编辑
影响因子:4.281
有趣的是,在对维生素K1和K2异构体进行全面评估的研究中,只有K2与心血管获益相关,K1则无。此外,维生素K2在心血管疾病中的作用范围较广。
目前全球仍有多项针对心血管患者补充维生素K2的大型临床研究在进行,结果将进一步完善其在该领域的证据体系。
维生素K2能改善骨质疏松症
维生素K2具有促进骨形成的作用,临床与实验研究均证实其对抗骨质疏松具有明确效果。在骨髓间充质干细胞中,维生素K2可促进骨生成的分化。
↘ 维生素K2支持骨分化,有助于抗骨质疏松
一项系统性综述(证据水平I[LOE = A])显示,维生素K2在日本患者中对预防椎骨骨折的比例为60%,对髋部骨折为77%,对非椎骨骨折为81%。其效果与传统双膦酸盐疗法相当。
另一项研究(LOE-B)纳入241名接受维生素K2(每天45 μ克)联合钙治疗的骨质疏松患者,结果表明其骨密度保持稳定;而接受钙与安慰剂治疗者的腰椎骨密度下降了2.5%,且治疗组骨折减少了65%。
与骨骼代谢相关的维生素K2作用通路
编辑
doi: 10.3390/foods10123136.
维生素K2可通过与OC无关的机制调节骨代谢。MK-7可促使成骨细胞前体细胞上调ALP、Runx2和Osterix,并促进其分化为矿化型成骨细胞;相反,在破骨细胞中维生素K2会降低其分化并抑制骨吸收。其机制与抑制细胞因子诱导的NF-κB激活有关:MK-7及较轻的MK-4可抑制NF-κB,而维生素K1未表现出类似活性。
↘ 维持骨密度,减少因骨质疏松引起的骨折
临床研究还表明,维生素K2可维持腰椎骨密度,减少年龄相关的骨质疏松性骨折;也能减少糖皮质激素诱发的骨质疏松性椎骨骨折,并在肝功能障碍相关骨质疏松中维持腰椎骨髓性低估表现;在瘫痪患者中,维生素K2则可增加脑血管疾病患者上肢的掌骨密度。
为期三年的随机对照试验(RCT,LOE = A)提示,每天补充维生素K2 180 μ克可减少腰椎和股骨颈骨密度的正常年龄相关下降,但不影响全髋关节;同时,维生素K2(MK-7)还能防止下胸椎椎高的下降。
维生素K2对肾病有益
去磷酸化-非羧化MGP(dp-ucMGP)是维生素K缺乏的公认研究标志物,最早在慢性肾病患者中被报道。dp-ucMGP水平与慢性肾病进展相关:晚期患者循环中的dp-ucMGP更高。
↘ 慢性肾病人群常缺乏维生素K
维生素K缺乏见于多种慢性肾病人群,包括尿路结石、肾结石与尿毒症。随着慢性肾病阶段加重并进入维持性血液透析,维生素K状态往往更明显受影响;动物模型与人体研究均提示,肾功能恶化时MGP可能发生过度表达,从而反映肾功能的进一步下降。
↘ 补充维生素K2有助于改善肾小球滤过等功能
已有研究表明,补充维生素K2可改善肾动脉功能,并抑制肾动脉钙化继续发展;同时也可能改善患者队列中的肾小球滤过。
因此,维生素K2在慢性肾病领域具有广阔前景,相关大规模研究正积极评估其作为治疗策略的效果。
维生素K2可能预防关节炎
↘ 缺乏K2可能导致骨关节炎
新出现的证据提示,维生素K可能在预防致残性骨关节炎方面发挥重要作用。维生素K摄入不足时,软骨与骨骼可能出现异常矿化。
动物与人体研究发现,维生素K状态与骨关节炎风险相关。以一项纳入719名日本参与者的基于人群横断面研究为例,膝关节骨关节炎风险升高与较低的VK摄入有关。在校正年龄、性别、BMI、总能量摄入、血浆维生素D以及股骨颈骨密度后,结果仍支持维生素K状态与手、膝骨关节炎呈负相关。
↘ 维生素K2有助于降低类风湿性关节炎
有证据表明,维生素K2补充剂通过降低CRP水平来减少类风湿关节炎中的炎症。维生素K2可能诱导类风湿关节炎滑膜细胞的凋亡。
在一项横断面研究中,给予100 μ克MK-7的组在3个月后病变活跃度评分显著下降,同时生化标志物(ESR、CRP和基质金属蛋白酶)有所改善。
维生素K2改善血糖控制
长期补充维生素K2可降低糖尿病发生风险。最大的一项研究纳入约38000名20至70岁男女,结果显示每日仅10 μg K2即可将糖尿病风险降低7%。
其潜在机制也逐渐被阐明:维生素K2可激活骨钙素;体外研究表明它能促进胰腺β细胞增殖,并提高胰岛素产生及CyclinD1表达。
↘ 补充维生素K2提升胰岛素敏感性并改善血糖控制
在人类研究中,饮食/补充维生素K2摄入与胰岛素浓度和敏感性显著变化相关。研究证明,高MK-4摄入量(30 mg/天)对健康年轻男性(n = 18岁,25.5–31.5岁)的胰岛素敏感性指数显著提升,相比安慰剂组(n = 15,24–31岁)在4周内显著增加。
同样,一项长期大型研究也显示,维生素K摄入量(平均摄入量:VK1 200±98微克/天,VK2 3±1/7微克)与2型糖尿病风险降低之间呈线性反相关。
维生素K补充剂可能作为一种新型辅助疗法,以改善血糖控制和生活质量。
维生素K2可能具有抗癌效果
目前已有大量研究探讨维生素K家族的潜在抗癌作用。
↘ 维生素K2有助于抑制肝细胞癌、肺癌细胞等
维生素K2可能通过多种途径发挥作用,包括蛋白激酶A、蛋白激酶C、核因子κB以及类固醇和外来受体。抑制人类肝细胞癌的生长与侵袭,并对肿瘤复发产生中度抑制。
体外研究还显示,其对肺癌细胞生长的抑制呈剂量依赖性,胰腺癌细胞亦观察到类似效应。一项纳入超过11000名患者的队列研究表明,较高的维生素K2与晚期前列腺癌显著减少相关;而维生素K1摄入增加与前列腺癌减少无关。
维生素K2调节神经认知
维生素K2可能通过多种机制支持神经功能。维生素K2的肝外活性已通过不同组织中K2循环酶的活性变化在体内得到阐明。
↘ 维生素K2对神经元有保护作用
值得注意的是,维生素K2酶在大脑中表达高度。已有文献记录K2对神经元的保护作用。MK-4提高了能量产生,并挽救了帕金森病中发现的PINK1突变。
此外,多种维生素K2类似物已被发现在神经元分化中起决定性作用。首个关于K2与神经元活动相关的流行病学研究涉及45名多发性硬化症(MS)患者和29名健康志愿者。与性别和年龄依赖的对照组相比,MS患者的K2水平显著降低。此外,K2水平与神经痉挛和视神经损伤相关。这些新兴研究表明,维生素K2在神经发育和疾病中可能扮演重要角色。
↘ 补充维生素K有助于改善认知及阿尔兹海默症
维生素K可能在阿尔茨海默病的发病机制中起作用,因为它在大脑中调节胰岛转移酶活性和生长因子/酪氨酸激酶受体活性。
有证据表明,阿尔茨海默病老年人的维生素K摄入量显著低于社区对照组。摄入维生素K可能改善健康老年人的认知功能。一项研究显示,维生素K与更好的言语情节记忆表现相关,尤其是在回忆任务中。维生素K拮抗剂的使用与认知障碍更频繁相关。
维生素K2影响免疫
近年来,体外研究提示维生素K2具有此前未知的免疫调节作用。
↘ 维生素K2可调节TNF-α、IL-1的表达
首先,MK-7可调节TNF-α、IL-1α和IL-1β的表达。研究还发现,维生素K2可抑制健康个体T细胞的增殖,而K1则无类似效果。
该结论在更多患有特应性皮炎的儿童及健康对照者的T细胞中得到验证,并得到透析患者独立研究的支持。两项研究均表明,维生素K2可减少活化T细胞数量并抑制其增殖。
综上,现有证据支持维生素K2可能作为新型免疫抑制剂发挥作用;其具体生理机制仍需进一步阐明。
维生素K2还可能影响肝脏健康与代谢
↘ 维生素K2对肝脏健康具有积极作用
维生素K在肝脏中的作用已明确:参与凝血因子生成及VKDP激活。既往研究多关注K1,但K2生物活性更高,可能与肝组织中的作用类似。近期研究还提示,维生素K2可能促进卵形细胞再生,并促进干细胞培养中肝细胞的成熟。
此外,多项试验发现MK-4对由酒精性与非酒精性肝硬化引发的肝癌具有有效的抑制作用;维生素K2补充在肝硬化治疗中也呈积极趋势。然而仍需进一步研究,以确定其效果是否具有统计学意义,并阐明维生素K2在肝病中的作用机制。
↘ 较高维生素K2与代谢综合征发生率较低相关
也有研究探讨了维生素K2与代谢综合征(MetS)之间的关联。
在一项10年随访研究中,纳入女性(n=402;49–70岁)和男性(n=400;40–80岁),结果显示高VK2摄入量(210.3 ± 127.0 μg/d)与MetS发生率降低相关(反映为三酰甘油水平下降及腰围减小);而VK1治疗组(31.1 ± 12.5 μg/d)未见类似相关性。
但一项包含5800名成年人(20–45岁)的横断面研究并随访6年发现,较高的VK1摄入量(84.8 ± 3.2 μg/天)可能有利于降低MetS患病率(以高血压下降和HDL胆固醇升高为指标)。
前面已梳理出维生素K2在多方面具有关键的生理作用,那么当机体处于维生素K2缺乏状态时,相关的代谢与调控过程可能就会失衡,从而带来一系列潜在危害。
维生素K缺乏的症状
维生素K是多种凝血相关蛋白的γ-羧化所必需的辅因子;当维生素K不足时,凝血级联中部分蛋白活性下降,可能导致凝血功能下降,增加出血倾向,表现出以下症状:
此外,维生素K缺乏还可能引发多个与维生素K相关的生理过程受到干扰:
1
骨代谢异常
维生素K2参与骨相关蛋白(如与矿化相关的蛋白)的激活,影响骨形成与骨矿化平衡。
缺乏时可能出现:
•骨密度下降;
•骨质量变差(矿化不足);
•骨折风险增加(尤其是中老年人群)。
2
血管钙化风险升高
维生素K2能促进某些“抗钙化”相关蛋白的活化;当K2不足,这些保护性作用减弱。
结果可能表现为:
•更容易发生动脉壁钙化;
•血管弹性下降;
•长期来看可能增加心血管事件风险。
3
慢性低度炎症与慢病风险
维生素K2除具有多种潜在作用外,还可能参与炎症相关的生物学反应;同时CRC相关材料提示,VK2同系物可影响炎症因子,例如在实验体系中抑制IL-8、IL-6、TNFα等促炎因子。
维生素K2缺乏的潜在危害:
•如果K2相关的抗炎/免疫调节效应不足,可能更容易出现或维持低度炎症状态;
•从而间接提高与炎症相关的慢病风险(具体到哪一种疾病,取决于人群、剂量、同系物构成、遗传与合并用药等)。
4
肠道菌群失衡
维生素K2很大一部分由肠道细菌合成,并与菌群之间存在互作关系;K2还能调节菌群动态,且与炎症及代谢相关状态密切相关。
因此维生素K2缺乏的危害可能还有:
•维生素K2缺乏可能反映或加重菌群失衡;
•菌群与K2的耦合变化可能影响代谢与炎症微环境;
•但“丰度变化→血清K2→临床终点”的因果链目前并不总是直观成立。
注:本文将在其中一个章节详细阐述肠道菌群与维生素K2之间的相互作用。
5
脂肪/代谢相关功能可能受损
维生素K2与代谢过程存在关联研究线索(例如与代谢综合征发生率、代谢指标的相关性)。
缺乏可能在部分人群中表现为代谢调控不佳,从而间接提高糖代谢异常、血脂异常与血压异常的风险(具体因果强度仍需进一步研究证实)。
6
神经系统与肌肉功能可能受影响
已有研究表明,维生素K2在神经系统相关通路中存在表达并发挥保护作用。
维生素K2缺乏可能在易感人群中与以下风险相关(多为“潜在/可能”):
•神经保护能力下降;
•神经功能维持不足;
•进一步影响认知与运动相关能力。
编者小结
维生素K2缺乏最可能的危害清单:
1.凝血风险升高:维生素K依赖凝血蛋白羧化不足。
2.骨健康下降:与骨代谢相关的维生素K依赖蛋白成熟不足,可能增加骨质疏松/骨重建失衡风险。
3.血管异常钙化倾向:影响连接组织钙化调控相关维生素K依赖蛋白。
4.炎症/慢病相关风险可能上升:维生素K2的抗炎/细胞保护方向减弱。
5.菌群生态可能进一步失衡:维生素K2—菌群互作可能形成双向反馈。
维生素K2不只参与凝血相关过程,还与骨代谢与矿化平衡、血管/组织钙化调控,以及炎症与慢性低度炎症、代谢稳态等生理活动存在联系。因此,当机体进入维生素K2缺乏状态时,相关代谢与调控环节可能失衡,进而带来潜在危害。
其风险表现包括:凝血功能受影响导致易淤青、瘀点、鼻/牙龈出血、伤口止血变慢、月经过多或异常出血等;以及骨代谢异常(骨密度下降、矿化不足、骨折风险增加)和血管钙化倾向(动脉壁钙化、血管弹性下降)等长期后果。
同时,维生素K2与炎症调节及肠道菌群互作的关联提示其缺乏可能影响炎症微环境与炎症相关慢病风险;但从“血清维生素K2变化”到“临床终点”的因果链并非在所有情境下都能直接成立。
总体来看,维生素K2缺乏的潜在影响具有多维度特征,后续可进一步结合肠道菌群与维生素K2的相互作用展开说明。
拓展:维生素K过高是否会有危害?
目前几乎没有动物或人类发生自然维生素K系统性毒性的报道。
尽管有人担心过多维生素K可能导致过度凝血,但尚未观察到这一现象,可能与γ羧化位点有限有关。相反,极高剂量维生素K可能引发低凝血酶原血症,人类病例中已有罕见记录。
★ 通常情况下不会造成危害
已有的人类数据表明,每日服用10 mg维生素K、连续1个月未见不良反应,与动物实验结果一致:在同等时间范围内,即使剂量达到2 g/kg也被认为是安全的。
一般来说,维生素K的副作用仅限于局部,例如过量服用维生素K2后出现轻微的胃肠道不适和皮疹,在停止服用后消失。
导致维生素K2缺乏,往往不是单一原因“突然缺了”,而更像是多条环节逐渐失去配合——从你吃进身体的食物,到它能不能被吸收、被运输、被利用,再到肠道菌群是否还在“按时供货”。当这些环节出现偏差,维生素K状态(尤其是与K2相关的功能供给)就可能跟不上身体需求。
此外,维生素K2并不是“一个数值搞定”。不同K2同系物在结构、生物利用度、体内分布与持续作用上存在差异;同样的摄入量,在不同人群中也可能转化为不同的功能性供给结果。再叠加个体差异(例如慢性炎症/代谢状态、可能影响维生素K相关通路的因素),就更容易出现“表面摄入并不极低,但功能层面仍接近不足”的情况。
1
摄入不足
↘ 饮食中维生素K2少、长期摄入不规律
人体自身不能在体内合成维生素K:脊椎动物依赖饮食供给;如果缺少规律摄入,体内储备会迅速被耗尽,这会构成维生素K缺乏的根本前提。
VK2主要来自特定食物谱:VK2主要来自发酵食品、部分奶酪及动物性来源;若饮食结构长期偏向“低发酵食品/低动物性、摄入以不含或少含VK2的食物为主”,更容易出现VK2摄入不足。
↘ 仅补“VK1”但不补“VK2”
部分研究/综述强调维生素K1与维生素K2在来源、吸收、靶向活性上存在差异;因此当饮食或补充只提供维生素K1而缺乏维生素K2等同系物时,不能自动等量“覆盖维生素K2的生物学需求”。
2
吸收障碍
维生素K属于脂溶性营养素,其被吸收与利用通常与消化吸收条件高度相关;若脂肪消化吸收受限,会削弱脂溶性维生素K(包含K2异构体)的吸收效率。
↘ 胆汁/脂肪吸收相关问题会降低K吸收与利用
维生素K2属于脂溶性维生素,其获得与利用往往高度依赖机体对脂溶性营养素的吸收条件;与此同时,不同形式的VK在吸收表现与体内运输机制上存在差异,而这些机制又要求机体能够完成有效吸收。因而,当这一有效吸收的过程出现不足或受损时,就会在总体层面上导致吸收环节出现障碍。
↘ 肠道转运与吸收相关蛋白/过程受影响
有文献中讨论维生素K在肠道吸收与代谢中的机制研究(如肠道受体/转运相关通路作为维生素K吸收调控因素),提示任何影响肠道吸收效率的因素,都可能把机体推向“维生素K状态下降”,从而造成VK2功能性缺乏。
3
肠道菌群失衡
↘ 肠道菌群失衡,内源性维生素K2供给下降
维生素K2可由肠道细菌生成,因此,当肠道菌群组成或功能受损时,内源性VK2供给可能下降。并且当炎症或代谢失衡导致菌群进一步失稳,也可能形成维生素K2生成/利用的不利循环。
↘ 化学用品和抗生素的过量使用
随着农业生产现代化推进,农药、化肥残留在农产品中的比例上升,且食品加工中防腐剂与人工添加剂的使用增加,可能导致肠道菌群失调,从而不利于VK2的微生物合成。
此外,抗生素可通过抑制或破坏产VK2细菌而降低VK2生成,头孢菌素类(如头孢糖素类)的影响尤为明显。质子泵抑制剂也可能影响VK2水平,其作用机制可能与对肠道菌群的影响相关。
4
药物使用
维生素K可与部分药物发生相互作用,从而影响体内维生素K2的浓度及其生物学效应。
↘ 华法林是一种维生素K拮抗剂
华法林属于香豆素类抗凝剂与维生素K拮抗剂,通过阻断肝脏及外周循环中的维生素K利用,导致继发性维生素K缺乏,进而可能对血管、骨骼、肾脏、大脑及其他系统(如炎症、免疫功能与肿瘤相关过程)产生不利影响。
VK2也可能与其他香豆素类抗凝剂(如酚丙香豆素、乙酰藻黄醇和硫氯马罗尔)发生严重相互作用。
↘ 降胆固醇和降脂药也会影响维生素K吸收
在胆固醇降药物方面,如考来替泊可通过阻断胆酸再吸收来降低胆固醇,但也会同时减少胆固醇及其他脂溶性维生素的吸收。奥利司他可降低肠道对膳食脂肪的吸收,因此可能削弱VK的吸收。
他汀类是常用的降脂药物,主要通过降低胆固醇以减少动脉粥样硬化风险,此外,他汀类药物还可能抑制VK2的合成。VK2是基质Gla蛋白(MGP)激活所需的辅因子,而MGP可帮助保护动脉免受钙化。有观点推测,由于他汀类在临床使用广泛,可能在心力衰竭与动脉粥样硬化的高发率上产生看似相互矛盾的加剧效应。
↘ 降磷药物治疗会影响维生素K的利用
在慢性肾病患者中,高磷血症较常见,因此需要使用降磷药物。研究发现,磷酸结合剂可能降低VK2的生物利用度。
体外研究显示,醋酸钙/碳酸镁、碳酸镧、碳酸钙及塞维拉麦碳酸盐均可能与VK2结合,影响其吸收,并可能削弱VK2抑制血管钙化的效果。
在一项纳入多位使用磷酸结合剂的慢性肾病患者研究中,使用塞夫拉默者的去磷化-非羧化MGP水平更高,提示维生素K水平可能降低。不过,这些相互作用的临床意义仍存在争议。
5
生理与遗传因素
↘ 体内转运与生物利用度差异
维生素K异构体的“运输路径、半衰期、组织分布、生物利用度”不同,这意味着即使总维生素K摄入看似存在,但维生素K2在体内到达靶组织并完成相关羧化修饰的效率也可能较低。
并且维生素K2包含不同链长同系物(如MK-4、MK-7等),其作用持续时间与体内行为不同。若某个群体摄入的维生素K2同系物谱不足(例如以某类同系物为主而另一类缺乏),可能出现对特定通路的激活不足,表现为功能性维生素K不足状态(即“缺乏的不是总量,而是对靶点的供能不足”)。
↘ 年龄、疾病会影响人体对维生素K的吸收
某些疾病状态会让机体更容易出现维生素K状态下降,如肝胆疾病患者以及代谢疾病老年患者的吸收能力下降可能导致维生素K2缺乏。
人体胃肠道的吸收能力随着年龄增长逐渐下降,这可能导致中老年人出现维生素K2缺乏症,因此有必要补充膳食。此外,新生儿也存在维生素K缺乏的风险,因为自身维生素K储备不足,母乳中的维生素K水平较低,未成熟的胃肠道微生物群很可能不是维生素的来源。
注:有研究发现纯母乳喂养的婴儿比配方奶喂养的婴儿更容易患维生素K维生素低水平。
总结:维生素K2缺乏的“病因框架”
1.摄入不足:人体不合成 + 储存被耗尽;维生素K2主要来自发酵/特定动物性食物。
2.吸收障碍:维生素K2为脂溶性,消化吸收条件改变会降低吸收与利用。
3.肠道菌群失衡:菌群生成维生素K2与互作关系,菌群功能下降→供给不足。
4.药物使用:部分药物是维生素K2的拮抗剂,影响其吸收利用。
5.体内利用/转运差异:维生素K1与维生素K2生物利用度、运输与靶向激活不同,可能出现“功能性缺乏”。
6.疾病/代谢需求改变:衰老与慢性疾病背景使维持足够状态更困难。
肠道微生物并不单是人体肠道的“居住者”,它们更像一个持续运转的代谢工厂:一方面,菌群能够合成并补给宿主所需的维生素家族(主要为大多数水溶性B族维生素及维生素K2);另一方面,这些微生物衍生分子又会进一步塑造肠道局部环境,影响免疫稳态与炎症生态位。
维生素K2正是这作用网络中的关键一环——它由特定肠道菌群产生,当宿主免疫状态、生命阶段与饮食结构改变时,这个供给又会被重塑。
本章将系统阐释维生素K2与肠道微生物群之间有哪些具体相互作用,以及这些作用如何为理解肠道稳态与疾病风险提供新的机制视角。
▸ 肠道菌群对维生素K2的“供给功能”
编辑
为了更好地理解肠道里维生素K2是怎么被细菌“造出来的”?我们先把生物合成这条“生产线”讲清楚。维生素K2的合成并不只依赖一种原料,许多碳源都可以进入细菌的代谢系统并最终被用来制造维生素K2。
↘ 维生素K2的生物合成过程
从结构上看,维生素K2的分子主要由两部分组成:
细菌生成VK2的过程可以概括为:先把甘油/糖类等底物加工出异戊二烯前体(用于做侧链)和DHNA骨架(用于做环),再通过特定的通路把侧链拼到骨架上,最后甲基化完成甲萘醌形成。
维生素K2的生物合成代谢途径
编辑
doi: 10.1016/j.biotechadv.2019.
↘ 能够合成维生素K2的肠道细菌
宏基因组和大规模人群研究表明,肠道菌群在结肠等部位对维生素稳态具有功能性供给作用。多数产维生素的微生物群通常只能合成单一类B或K2维生素,能够产生五种或更多维生素的细菌仅占2.7%。研究通过菌株筛查来评估内源性VK2的合成能力,并提出明确的候选菌有以下几种:
•Lactobacillus(乳杆菌属)
•Bifidobacterium(双歧杆菌属)
•Bacillus(芽孢杆菌属)
并且不同菌群可能负责不同MK形式(MK-4、MK-7、MK-9等),下面这些细菌也被发现能够产生维生素K2:
编辑
维生素合成途径的关键微生物贡献者
编辑
doi: 10.1128/msystems.00929-24.
▸ 菌群组成与菌源VK2水平的相关性
↘ 粪便中菌源维生素K2与肠道菌群组成相关
有研究测量粪便与血清中的维生素K2:发现粪便中菌源维生素K2呈现个体差异,且其水平与肠道微生态组成(如与特定菌群相关)有关;但在该研究中维生素K2未在血清中检出。
↘ 一些菌属可能与维生素K2水平共同波动
在健康成人研究中,识别了与维生素K2水平相关的菌群,提示Bacteroides、Prevotella等与维生素K2水平存在共同波动的现象,即当这些菌群相关指标发生变化时,维生素K2水平也会表现出相应的变化,从而反映出维生素K2与特定肠道菌群组成之间可能存在紧密耦合关系。
▸ 维生素K2在肠道的功能效应
↘ 可进入并作用于肠道相关细胞
编辑
结直肠癌研究显示,维生素K2(特别是长链同系物)能够进入肠上皮细胞(如Caco-2)并表现非毒性效果,提示其并非只能停留在肠腔中作为“旁观代谢物”,而可能在局部细胞界面发生作用。
↘ 长链同系物更可能与抑制促炎因子相关
研究强调:维生素K2-MK7与维生素K2-MK9可降低促炎细胞因子(如IL-8、IL-6、TNFα),从机制层面提示“菌群产出的哪类同系物”会影响“局部炎症生态位”。这把“菌群—代谢产物—炎症表型”连接起来。
维生素K2同源物对肠上皮细胞促炎IL-8浓度的影响
编辑
doi: 10.1186/s12935-023-03114-2.
炎症因子下降意味着肿瘤微环境的“驱动因子”被削弱:IL-8、IL-6与TNFα等促炎因子通常与肿瘤炎症微环境、免疫抑制/募集、上皮细胞应激等相关。维生素K2同系物能降低这些因子分泌,提示其可能改变CRC的炎症生态位,使得肿瘤发生发展的条件不那么“有利”。
▸ 在免疫稳态中的双向调控
↘ 微生物来源维生素可作为免疫稳态的协同因子
人类主要从饮食获得维生素,但肠道微生物是重要补给来源;并且肠道菌群与免疫系统互作会改变维生素生物合成,进而影响免疫反应与肿瘤免疫治疗效果。
↘ 供给不足在免疫层面可能放大风险
维生素在多种细胞过程中的重要性使得即便是轻微缺乏也可能造成健康问题。如果菌群失衡导致维生素K2供给减少或同系物谱改变,则可能通过免疫炎症通路影响肠道稳态与肿瘤微环境。
▸ 影响菌群产生维生素K2的因素
↘ 超过80岁老人与婴儿产生维生素K2能力较弱
对维生素相关基因丰度的分析显示,与宿主年龄密切相关的差异清晰可辨。具体而言,成人与80岁及以上健康老年人之间,在微生物维生素生物合成途径上存在最显著的差别。
80岁以下老年人的肠道微生物群维生素合成能力仍与年轻成人相对相近。相较之下,当年龄超过80岁时,九种维生素中有七种的生物合成能力显著下降,提示持续且渐进的功能衰退。
不同生命周期微生物群来源的维生素合成基因
编辑
doi: 10.1128/msystems.00929-24.
与健康成人相比,婴儿在九条微生物维生素生物合成途径中有六条的相关指标减少21%至49%。这一结果提示,出生后前三年微生物群的功能尚未完全成熟。
↘ 不同地域人群合成维生素K2能力不同,可能与饮食差异有关
此外,地理来源显著影响维生素生物合成通路的多样性/丰度,其中包括K相关合成潜力,从而意味着维生素K2“可由微生物提供”的程度会在不同人群中变化。
主要维生素生产细菌丰度因地理来源而异
编辑
doi: 10.1128/msystems.00929-24.
这可能与饮食差异有关,如全谷物与精制谷物饮食使粪便维生素K2水平出现差异,这提示饮食通过重塑底物/发酵环境,从而改写菌群组成,并最终影响维生素K2的输出。
不同地理区域的维生素生物合成潜力
编辑
doi: 10.1128/msystems.00929-24.
编者小结
肠道菌群和维生素K2之间的关系,像是一条在肠道里持续运转的协作链:菌群会提供维生素K2所需的合成能力与底物环境,而维生素K2不同的同系物(如长链形式)又可能反过来影响肠道局部细胞的状态与炎症水平。
在“供给”层面,能合成维生素K2的细菌并不只依赖单一原料;它们通过各自的代谢通路把底物加工成维生素K2的关键结构,再一步步完成拼接与修饰。研究提示,粪便中的菌源维生素K2水平会因人而异,并且可能与某些菌群的变化同步,说明菌群组成与维生素K2输出之间存在紧密关联。
在“效应”层面,维生素K2可以进入肠上皮相关细胞,并显示出调节作用。尤其是一些长链同系物更倾向于与促炎因子下降相关,这意味着它可能帮助“调低”肠道炎症生态位,从而为肠道稳态和结直肠癌等相关疾病微环境带来更好发展的方向。
从整体人群看,这套供给能力还会随年龄与生活方式而变化:例如80岁以上人群与婴儿的合成能力往往更弱;而不同饮食结构也会影响粪便维生素K2水平。总的来说,维生素K2像是菌群与肠道健康之间的一座“桥梁”,它的产量与类型会随菌群和环境而改变,进而影响炎症、免疫稳态以及相关疾病风险。
如何测量自身维生素K(K2)?
准确评估维生素K缺乏并不容易;即使借助最先进的检测手段,在人体生物样本中也很难准确确定其含量。维生素K可在血浆中测量,但由于其存在多种形式,且异常的脂质成分可能干扰结果,因此检测精度仍受限制。目前主要采用以下几种方法:
注:除非摄入量高,否则维生素K2在血液中通常非常低或难以检测,因此血液中的缺失并不总是意味着严重缺乏。
⑴ 直接测量—主要是色谱、质谱
色谱方法已成为直接测量维生素K的主流路线:先用液相色谱把不同K同系物分离,再用特定检测器(如荧光或质谱)定量。
在多种维生素K检测中,MS(质谱)成为首选的原因是它能更专一地区分多种同系物/同分异构体。不过局限仍存在:复杂样本前处理会影响回收率与结果一致性。
⑵ 不直接测K本身—功能性生物标志物
如果维生素K缺乏,会导致维生素K依赖的γ-羧化反应不足,于是相关蛋白以未羧化形式释放或检测到。
①未羧化的维生素K依赖蛋白
机制:维生素K缺乏 → Gla蛋白无法正常羧化 → 以未羧化形式释放。因此未羧化蛋白可作为替代定量靶点。
局限性:
-并非所有未羧化蛋白都会被分泌;
-表达升高可能压倒羧化系统;
-并非只有凝血相关Gla蛋白在健康人群都能100%羧化;
-时间因素/半衰期差异:不同凝血因子的半衰期不同,导致某些指标对轻度缺乏的敏感性与“出现时间窗口”不同。
②去羧前凝血酶—早期标志物,但敏感性较低
去羧前凝血酶(PIVKA II)是较早被用于维生素K状态评估的标志物,但敏感性较低。
③未羧化骨钙素—骨维生素K状态标志物
另一种评估骨相关维生素K状态的标志物是未羧化骨钙素。
局限性:
-总骨钙素含量不同个体差异大,所以“未羧化比例”可能更合适;
而且雌激素水平可能影响相关解读。
④未羧化-未磷酸化MGP—与血管/软组织钙化风险相关
MGP(矩阵Gla蛋白)与组织钙化调控相关,因此它更偏向“组织层面K效应”,但仍需结合检验方法与生理背景。
⑤尿液Gla残基(Gla残留浓度)— 维生素K膳食耗竭的敏感标志之一
对维生素K1膳食耗竭,尿液中Gla残留浓度是较敏感的标志物。对维生素K2缺乏的数据不足,尚未确定可靠的“界限值”。
通常需要24小时尿液采集(对依从性影响大)。
根据谷禾检测报告判断你的维生素K
谷禾肠道菌群检测通过分析你的肠道菌群组成与相关特征,可以在一定程度上提供关于你维生素K2状况的线索。
编辑
⑴ 维生素K2相关功能的线索
谷禾报告通常会给出菌群组成/优势菌属,有时也会做功能预测(或与健康维度的关联解释)。你要做的是:
找到报告里与“维生素相关合成/代谢”、或与维生素K(K2)、或与脂溶性维生素代谢/发酵相关的描述。
⑵ 可能影响维生素K2吸收的环境
维生素K2是脂溶性,吸收强依赖脂质运输与胆汁环境。所以你的菌群报告里如果能看到:
•胆汁酸相关、脂质代谢相关的风险信号(如某些与胆汁代谢不良有关的表现);
•导致吸收不佳的肠道状态(如消化吸收弱、炎症信号提示等)。
这部分能帮助解释:即便菌群“潜在供给”不错,你血/组织维生素K2也可能并不高。
⑶ 炎症/生态失衡解释“利用率”与长期效果
前面读到的维生素K2描述强调其可能涉及炎症相关过程。若谷禾报告提示菌群失衡或炎症倾向:
需要把策略从“只补维生素K2”转向“稳菌群生态 + 配合K2供给”,更符合系统性调节思路。
如何有效提高维生素K2水平?
由于维生素K2水平通常不会过高,所以我们这里只介绍在水平偏低时如何提升。具体可以从三个方向来入手,也就是围绕“补给 + 饮食 + 菌群生态位”这三方面展开:
首先在补给层面考虑提供与维生素K2相关的直接补充剂;其次在饮食层面,通过饮食结构与可发酵成分等因素提供合适的食物和发酵基础;最后在菌群生态位层面,结合菌群状态去理解并调整肠道内更利于相关功能发挥的生态环境。
维生素K的每日推荐摄入量因年龄、性别和生理状态而异。一般而言,成年男性每日需约120微克(0.12毫克),女性为90微克(0.09毫克),孕妇或哺乳期女性需75-90微克。婴幼儿及青少年需求量随年龄递增,从2微克到75微克不等。而饮食中的维生素K2摄入量平均约占维生素K总摄入量的25%。
⑴ 直接补充维生素K补充剂
常见策略是选:
•MK-7(长链,常用,半衰期通常更长);
•或在特定场景选MK-4。
具体选哪种同系物,最好与你的目标(骨/血管/炎症倾向)和复测结果对齐。
用法策略(安全与可评估):
先小幅、持续:连续用8–12周是比较常见的“观察窗口”;
复测同样指标:看浓度/同系物谱是否上升,以及你关心的功能读出是否改善。
药物干扰(非常关键):
若你在用华法林或其他维生素K拮抗药:
不要自行开始/加量补K2;
必须由医生调整剂量,并加强INR监测;
这点直接关系安全性。
⑵ 饮食补充外源性维生素K2
饮食层面要抓两个点:
1.维生素K2的直接来源;
2.脂肪同食与吸收环境(因为K2脂溶性)。
不同食物中维生素K1和维生素K2的含量
编辑
Zhang T,et al.Foods.2024
富含维生素K2的食物主要有以下几类:
①发酵食品(主要来源):
纳豆(由芽孢杆菌发酵大豆制成):含最高K2含量,尤其富含 MK-7(K1:321 ng/g;K2:10985 ng/g)。
酸菜:维生素K2的重要来源之一。
②发酵乳制品
奶酪:尤其陈年/发酵更久的类型。
酸奶:不同品牌/工艺差异很大,但可作为常规摄入。
③部分肉类和动物内脏
肉类中维生素K2在以下样本有较高含量(以微克/100克计):
鸡肉:10.1
牛肝:11.2
肉末:7.6
牛肉:1.9
猪肝:1.8
④部分鱼类
鳗鱼:63.1 微克/100克(最高);
比目鱼:5.3 微克/100克;
鲭鱼:0.6 微克/100克;
鲑鱼:0.6 微克/100克。
⑶ 调整饮食—改变菌群代谢环境和底物
饮食结构会通过改变肠道菌群在代谢过程中可获得的底物类型与供给方式,进而影响菌群代谢这些底物的效率与方向;在这样的变化之下,菌群产生维生素K2的过程也会随之受到影响。
建议的可执行食物结构:
主食优先全谷物:燕麦、糙米/胚芽米、全麦面包、藜麦等;
每天加入可发酵纤维:豆类(鹰嘴豆、扁豆、红豆等)、多种蔬菜(尤其叶菜之外),并适量藻类/菇类(按耐受选择)。
时间与频率:
建议至少持续8–12周再评估指标:菌群结构与代谢输出的改变通常不会在“几天内”立刻显现。
⑷ 菌群策略:补充益生菌
益生元(纤维)更像是“喂环境”,通常更稳妥。
也可以考虑直接补充枯草芽孢杆菌(Bacillus subtilis)、乳酸菌(Lactococcus lactis,Leuconostoc lactis,Leuconostoc mesenteroides)等能够代谢产生维生素K2的细菌。不过益生菌是否能提升K2同系物输出,取决于你的菌群背景与生态位是否匹配。
因此最好的做法仍然是:干预后复测K2或菌群结构,而不是只凭感觉。
维生素K2不仅参与传统的凝血过程,还与骨健康、心血管代谢、免疫炎症以及血糖控制等多方面息息相关。更关键的是,维生素K2在体内的“作用落点”,并非孤立存在——它离不开肠道菌群的持续参与与共同调控:一方面,肠道菌群能够合成并在一定程度上为宿主提供维生素K2相关物质;另一方面,菌群及其代谢产物会进一步塑造肠道局部环境,影响炎症水平与免疫稳态,从而左右炎症生态位与整体健康水平。
因此,在关注维生素K2时,更应该把视线延伸到肠道微生态与菌群结构。与其只纠结“要不要补维生素K2”,不如思考“为什么同样的补充效果在不同人身上可能不一样”。当菌群生态失衡、肠道环境不利时,维生素K2的摄入与利用可能难以充分发挥;而当饮食与生活方式为菌群提供合适的生存条件时,相关功能更可能在体内被更有效地启动。
维生素K2很重要,但菌群生态的健康状态同样决定了它在体内能否被更好地“用起来”。因此,除了饮食习惯以外,还要从更系统的生活方式入手——例如规律作息、适度运动、压力管理、减少过量饮酒和不必要的抗生素使用、保证充足睡眠等,帮助维持更有利的肠道环境与免疫稳态。或许正是这些协同作用,更能帮助降低疾病风险,提升整体健康水平。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Schwalfenberg GK. Vitamins K1 and K2: The Emerging Group of Vitamins Required for Human Health. J Nutr Metab. 2017;2017:6254836.
Halder M, Petsophonsakul P, Akbulut AC, Pavlic A, Bohan F, Anderson E, Maresz K, Kramann R, Schurgers L. Vitamin K: Double Bonds beyond Coagulation Insights into Differences between Vitamin K1 and K2 in Health and Disease. Int J Mol Sci. 2019 Feb 19;20(4):896.
Zhang T, O’Connor C, Sheridan H, Barlow JW. Vitamin K2 in Health and Disease: A Clinical Perspective. Foods. 2024 May 24;13(11):1646.
Yan Q, Zhang T, O’Connor C, Barlow JW, Walsh J, Scalabrino G, Xu F, Sheridan H. The biological responses of vitamin K2: A comprehensive review. Food Sci Nutr. 2023 Jan 6;11(4):1634-1656. doi: 10.1002/fsn3.3213. Erratum in: Food Sci Nutr. 2025 Jan 27;13(1):e70005.
Mladěnka P, Macáková K, Kujovská Krčmová L, Javorská L, Mrštná K, Carazo A, Protti M, Remião F, Nováková L; OEMONOM researchers and collaborators. Vitamin K – sources, physiological role, kinetics, deficiency, detection, therapeutic use, and toxicity. Nutr Rev. 2022 Mar 10;80(4):677-698.
Bus K, Szterk A. Relationship between Structure and Biological Activity of Various Vitamin K Forms. Foods. 2021 Dec 17;10(12):3136.
Simes DC, Viegas CSB, Araújo N, Marreiros C. Vitamin K as a Diet Supplement with Impact in Human Health: Current Evidence in Age-Related Diseases. Nutrients. 2020 Jan 3;12(1):138.
Tarracchini C, Lugli GA, Mancabelli L, van Sinderen D, Turroni F, Ventura M, Milani C. Exploring the vitamin biosynthesis landscape of the human gut microbiota. mSystems. 2024 Oct 22;9(10):e0092924.
Tarracchini C, Bottacini F, Mancabelli L, Lugli GA, Turroni F, van Sinderen D, Ventura M, Milani C. Approaches to dissect the vitamin biosynthetic network of the gut microbiota. Microbiome Res Rep. 2025 Oct 20;4(4):37.
Ren L, Peng C, Hu X, Han Y, Huang H. Microbial production of vitamin K2: current status and future prospects. Biotechnol Adv. 2020 Mar-Apr;39:107453.
Smajdor J, Jedlińska K, Porada R, Górska-Ratusznik A, Policht A, Śróttek M, Więcek G, Baś B, Strus M. The impact of gut bacteria producing long chain homologs of vitamin K2 on colorectal carcinogenesis. Cancer Cell Int. 2023 Nov 10;23(1):268.
Zhang Z, Liu L, Liu C, Sun Y, Zhang D. New aspects of microbial vitamin K2 production by expanding the product spectrum. Microb Cell Fact. 2021 Apr 13;20(1):84.
Hariri E, Kassis N, Iskandar JP, Schurgers LJ, Saad A, Abdelfattah O, Bansal A, Isogai T, Harb SC, Kapadia S. Vitamin K2-a neglected player in cardiovascular health: a narrative review. Open Heart. 2021 Nov;8(2):e001715.
Kozioł-Kozakowska A, Maresz K. The Impact of Vitamin K2 (Menaquionones) in Children’s Health and Diseases: A Review of the Literature. Children (Basel). 2022 Jan 5;9(1):78.
Gholami H, Chmiel JA, Burton JP, Maleki Vareki S. The Role of Microbiota-Derived Vitamins in Immune Homeostasis and Enhancing Cancer Immunotherapy. Cancers (Basel). 2023 Feb 18;15(4):1300.
Xue L, Singla RK, Qin Q, Ding Y, Liu L, Ding X, Qu W, Huang C, Shen Z, Shen B, Miao L. Exploring the complex relationship between vitamin K, gut microbiota, and warfarin variability in cardiac surgery patients. Int J Surg. 2023 Dec 1;109(12):3861-3871.
Karl JP, Meydani M, Barnett JB, Vanegas SM, Barger K, Fu X, Goldin B, Kane A, Rasmussen H, Vangay P, Knights D, Jonnalagadda SS, Saltzman E, Roberts SB, Meydani SN, Booth SL. Fecal concentrations of bacterially derived vitamin K forms are associated with gut microbiota composition but not plasma or fecal cytokine concentrations in healthy adults. Am J Clin Nutr. 2017 Oct;106(4):1052-1061.
谷禾健康
土壤作为地球上生物多样性最丰富的栖息地之一,不仅是植物生长的基础,也是众多微生物的”家园”。
然而,这片看似平静的地下世界,却隐藏着威胁人类健康的”隐形杀手”——人类细菌病原体。如单核细胞增生李斯特菌、铜绿假单胞菌、炭疽杆菌、沙门氏菌、大肠杆菌、结核分枝杆菌复合体和鼠疫杆菌等危险病原体,都可能在土壤中找到生存的港湾。
据统计,2019年全球约有770万例死亡与人类细菌病原体有关,这些数字背后,土壤作为病原体的自然来源和传播媒介,扮演着不容忽视的角色。
人类病原体通过多种途径进入土壤:动物和人类排泄物的渗透、农业实践中的灌溉和粪便应用、空气传播的病原体和孢子沉积等。一旦进入土壤,这些病原体可能成为常驻微生物组的一部分,并通过生食摄入、直接接触、吸入或昆虫及野生动物传播等多种途径感染人类。
本文基于最近一篇发表在《Cell Host & Microbe》上题为“Soil microbial diversity associates with lower prevalence of human bacterial pathogens across global soils”的研究,发现土壤微生物多样性与病原体流行率在全球呈负相关,并揭示病原体丰度与致病力及全球死亡率模式显著相关。在全球变化情景下,多数优势病原体比例可能上升。研究还绘制了全球土壤主要人类病原体分布图,阐明其生物地理与生态特征,为制定监测与风险管理策略、降低疫情暴发风险提供依据。
这意味着,在肠道菌群检测中发现的某些异常或致病菌,并不一定源于短期感染,而很可能是长期环境暴露累积的结果。因此,病原菌的控制不能仅依赖益生菌调节或抗生素干预,更重要的是减少其从环境进入人体的路径。
如果肠道检测报告中出现如沙门氏菌、致病性大肠杆菌、类鼻疽杆菌、克雷伯氏菌等,应重点考虑其环境来源。土壤是这些病原体的重要储存库,日常园艺、农作活动或儿童玩土等行为,都可能在无意识中增加暴露风险。特别是在潮湿或热带地区,这类病原体更易长期存活并富集。
农产品则是连接土壤与人体的重要媒介。叶菜类直接接触土壤,根茎类附着土壤较多,而水果也可能因灌溉水或土壤飞溅受到污染。如果种植过程中使用未经充分处理的粪肥,或灌溉水源受到污染,再加上洪水或暴雨等极端气候事件导致土壤扰动,都会显著增加农产品携带病原体的风险。此外,动物粪便通过土壤进入食物链,或宠物将病原体带入家庭环境,也构成重要的传播路径。
值得特别注意的是,病原体具有明显的地区性与季节性特征。不同地区的土壤病原谱差异显著,例如热带地区更易出现类鼻疽杆菌等环境致病菌,而干旱地区则更利于孢子类病原体的长期存在。同样,季节变化也会影响病原体丰度,雨季和洪水之后往往出现显著上升,高温条件促进细菌繁殖,这些都直接影响人群暴露风险。
▸ 土壤中的人类细菌病原体
一项覆盖59个国家、1602个土壤宏基因组的全球研究,为我们揭示了土壤中人类细菌病原体的分布模式。
研究中样本地点的全球分布
Xiong C,et al.Cell Host Microbe.2026
研究人员共鉴定出80个被归类为潜在土壤栖息人类病原体的细菌分类群,包括类鼻疽假单胞菌(Burkholderia pseudomallei)、结核分歧杆菌复合群(mycobacterium tuberculosis complex)、铜绿假单胞菌(Pseudomonas aeruginosa)、肠沙门氏菌(Salmonella enterica)、克雷伯氏菌(Klebsiella spp.)和志贺氏菌(Shigella spp.)等。
• 优势病原体主导模式
在这80种病原体中,25种被确定为优势病原体—它们不仅广泛存在(出现在≥80%的样本中),而且在病原体群落中表现出较高的相对丰度。
令人惊讶的是,这25种优势病原体仅占所有病原分类群的31.3%,却贡献了总病原体序列的90.8%。这种”少数主导”的模式与土壤中优势细菌和真菌的分布规律一致,反映了微生物群落结构的普遍特征。这些优势致病类群属于23种病原体,分布在19个属中,如伯克霍尔德氏菌属(Burkholderia)、分支杆菌属(Mycobacterium)、诺卡氏菌属(Nocardia)、假单胞菌属(Pseudomonas)、沙门氏菌属(Salmonella)和克雷伯氏菌属(Klebsiella)等。
▸ 高致病性优势病原体的健康威胁
在这23种显性病原体中,有11种被列为每年导致770万人死亡的33种人类细菌病原体之首,包括铜绿假单胞菌、肺炎克雷伯菌、肠道沙门氏菌、大肠杆菌、鲍曼不动杆菌、军团菌属、沙雷氏菌属和气单胞菌属等。
• 结核分枝杆菌每年导致大量感染且可在土壤中存活
其中,结核分枝杆菌尤为引人注目,其每年可导致约1060万人感染和160万人死亡。研究发现其成员能够感染各种家养和野生哺乳动物,并能在土壤中以毒力形式存活和增殖,使用变形虫和野生动物等替代宿主维持生存。
• 麻风分枝杆菌、淋病奈瑟菌也能在土壤中存在
值得注意的是,一些传统上不被认为是土壤传播的病原体(如结核分枝杆菌、麻风分枝杆菌和淋病奈瑟菌)也在土壤中被检测到。虽然它们从土壤到人类的传播途径尚不清楚,但最新研究发现蚊子可能是溃疡分枝杆菌(M. ulcerans)的新传播途径,这提示我们许多病原体的传播机制仍有待探索。
这些发现强调了重新关注病原体在土壤中的存活机制及其向人类传播途径的重要性,这对于有效监测和风险管理至关重要。
▸ 病原体的全球分布
通过对21个陆地生物群落的分析,研究发现了人类病原体在不同气候和植被类型下的分布模式。数据显示,主要人类病原体的相对丰度在热带和寒冷农田、温带湿地、温带农田以及热带和温带森林中最高。
进一步分析发现,农田、湿地和森林生态系统,特别是在热带和温带地区,表现出最高的优势病原体相对丰度。而在热带和干旱农田中,人类病原体的多样性最为丰富。
• 热带地区病原体多样性和患病率最高
分布模式与基于流行病学数据的临床研究结果一致——热带地区人类病原体的多样性和患病率最高。例如,东南亚(热带地区)报告了大多数结核病(由结核分枝杆菌引起)和麻风病(由麻风分枝杆菌引起)病例。
为探究环境因素对优势人类病原体全球分布的影响,研究人员通过随机森林和相关性分析发现:年均降水量(MAP)、年均温度(MAT)、降水季节性(PSEA)及土壤pH是最关键因素;此外,海拔、土壤质地、有机碳、土壤生物多样性(含微生物物种与功能基因多样性)及人口密度也具有重要作用。
全球土壤中主要人类细菌病原体的环境驱动因素
编辑
Xiong C,et al.Cell Host Microbe.2026
1
降雨与土壤病原体丰度正相关
• 降雨能够增加病原体在土壤中的分布
研究结果显示,降雨与23种主要病原体中的19种(约82.6%)相对丰度显著正相关。类鼻疽杆菌(B.pseudomallei)在潮湿土壤中生长最好,类鼻疽病例的增加与异常强降雨事件有关。
降雨增加可以提高土壤孔隙水含量,促进病原体的运动,增强其活性和流行性,从而促进其在土壤中的分布。
• 植物覆盖率和生产力也影响病原体丰度
植物覆盖率和生产力与病原体丰度同样呈正相关,这可能反映了植物驱动的土壤有机输入和水分稳定性增加,为某些病原体分类群的持久性提供了有利条件。
相比之下,降水季节性(23种病原体中的19种)、海拔(16种)和土壤pH值(14种)与这些分类群呈负相关。
全球不同生态系统中主要人类病原体的分布模式
编辑
Xiong C,et al.Cell Host Microbe.2026
2
土壤pH值与病原体呈负相关
土壤pH值与最主要的病原体呈负相关,表明酸性土壤往往含有更高的病原体丰度。
• 酸性土壤会破坏原有微生物结构,增加病原体增殖
这与最近的研究证据一致——土壤酸化会改变微生物群落结构,破坏关键的微生物功能,从而削弱微生物组限制病原体增殖的能力。
分析还揭示了降雨和土壤pH值之间存在显著的关系,这意味着气候变化下一些地区的降水增加可能会通过提供最佳水分条件和进一步酸化土壤来促进病原体的丰度。同样,不可持续的农业实践(如过度施肥)会加速土壤酸化,创造有利于人类病原体扩散的条件。
3
温度升高:病原体扩散的”催化剂”
温度与最主要的人类病原体(包括洋葱伯克霍尔德菌群(Burkholderia cepaciaComplex)、结核分枝杆菌复合体和炭疽杆菌)的相对丰度呈正相关,这表明全球变暖可能会进一步增加全球土壤中人类病原体的流行率。
这一发现说明气候变化可能会加剧人类致病性疾病,并表明在未来的气候情景下,降雨量和温度增加的地区可能成为人类细菌病原体的”热点”,进一步增加暴露、感染和死亡的风险。
除主要病原体外,研究还确定了其他8种病原体的环境驱动因素,包括柠檬酸杆菌属、志贺氏菌属、嗜肺军团菌、屎肠球菌、蜡样芽孢杆菌和问号钩端螺旋体等。这些病原体在降雨、温度和土壤特性方面与主要病原体具有相似的生态偏好。这些关于病原体当前分布和环境偏好的研究结果可以作为监测未来流行和爆发的基线数据,例如在筛查伯克霍尔德菌潜在爆发时,应优先考虑高降雨地区。
土壤微生物组多样性与病原体流行的关系是本研究的核心发现。研究基于宏基因组数据评估微生物物种多样性及功能多样性,并通过相关性与结构方程模型(SEM)分析其与人类病原体的关联;同时结合扩增子测序确定细菌和真菌多样性,并在全球200个土壤样本中加以验证。
▸ 微生物多样性与病原体丰度负相关
相关性分析显示,微生物物种多样性和功能多样性与大多数显性病原体的相对丰度呈显著负相关,包括类鼻疽杆菌、结核分枝杆菌复合物、炭疽杆菌、大肠杆菌和肠道沙门氏菌等。
• 土壤中细菌和真菌的多样性有助于减少病原体
在23种主要病原体中,15种和14种病原体分别与微生物种类和功能多样性呈显著负相关。研究还发现,与农业土壤相比,天然土壤中土壤微生物组多样性与主要人类病原体的相对丰度之间存在更强的负相关关系。
土壤微生物多样性决定主要人类病原体的全球分布
编辑
Xiong C,et al.Cell Host Microbe.2026
SEM分析进一步表明,土壤微生物多样性与优势人类病原体的相对丰度呈显著负相关。全球200个土壤样本亦证实:细菌和真菌多样性及细菌丰度均与主要病原体显著负相关。该结果拓展了以往土壤微观实验结论,表明提高微生物多样性可能抑制植物和人类病原体(如大肠杆菌O157:H7和肠道沙门菌)的增殖。
小编解释
较高的微生物多样性通过增加竞争者、耐压型和遗传策略类群,加剧竞争、扩大生态位占用并提升功能冗余,从而抑制病原体建立;这突显了保护土壤生物多样性对土壤、环境和人类健康的重要性。
为验证已鉴定的病原体与疾病毒力之间的关联,评估这些生物体的致病潜力,研究分析了病原体相对丰度与致病特征之间的关系。
• 土壤主要病原体丰度至少关联一种人类疾病特征
结果显示,23种主要病原体中有18种(包括类鼻疽杆菌、结核分枝杆菌、铜绿假单胞菌、鲍曼不动杆菌和大肠杆菌)以及一些其他重要病原体(如柠檬酸杆菌、嗜肺军团菌、伯氏考克斯氏体和蜡样芽孢杆菌)等,其相对丰度均与至少一种与人类疾病密切相关的关键致病特征显著正相关。
这些致病特征包括所有细菌病原体的毒力基因,根据其致病性分为不同的功能组,如毒素合酶、细胞毒性和毒力活性等。
人类细菌病原体与致病特征的关系
编辑
Xiong C,et al.Cell Host Microbe.2026
▸ 毒力因子与抗生素耐药基因
研究使用三个单独的数据库(PHI、VFDB和KEGG)进一步鉴定了与这些病原体相关的毒力因子,并使用DeepARG鉴定了抗生素耐药基因(ARG)。
• 土壤病原体相对丰度影响毒力因子与耐药性
分析表明,在全球范围内,显性病原体(类鼻疽杆菌、结核分枝杆菌、铜绿假单胞菌和鲍曼不动杆菌)的相对丰度与其相关毒力因子和抗生素耐药性之间存在很强的正相关关系。
这些发现进一步支持了识别人类病原体方法的稳健性,并证实了土壤中检测到的病原体可能会导致严重的疾病和死亡。
宏基因组揭示潜在病原体及其致病特征
为从全基因组层面验证宏基因组分箱识别显性病原体的可靠性,研究筛选出7个高质量(完整性≥90%、污染≤5%)MAG作为潜在病原体,其全球分布与定制数据库结果一致,且相对丰度与毒素合成和毒力活性等关键致病特征呈正相关。
• 宏基因组方法有助于识别土壤病原体
其中两个高质量MAG(T073.8和SRR8879131.4)与分枝杆菌的平均核苷酸同一性(ANI)达83%–84%,被认定为潜在重要病原体,并与温度和降雨量呈正相关。
这两者均携带与结核分枝杆菌复合群相关的五类致病特征(毒素合成、细胞毒性、毒力活性、器官损伤和宿主细胞死亡)、抗生素耐药基因(efpA,多重耐药)及外毒素基因(如磷脂酶C、VFC0235)。
结果表明,宏基因组学流程可用于从环境样本中识别潜在新兴病原体。
研究进一步评估了土壤人类病原体分布与全球相关死亡的关系。基于既往研究和世卫组织数据,汇总204个国家和地区的死亡率,并在国家尺度匹配到53个国家的数据。
• 土壤病原体分布与相关疾病死亡率相关
结果显示,麻风分枝杆菌(r=0.51,p=8.3×10^-5)和结核分枝杆菌复合物(r=0.47,p=0.0004)的相对丰度与病原体相关的全球死亡率(或感染病例)显著相关。
此外,细菌病原体相关死亡率与致病特征亦呈显著或接近显著相关,包括毒素合酶(r=0.45,p=0.0006)和毒力活性(r=0.25,p=0.07)。这些结果表明,土壤中人类病原体的流行可能与人类健康密切相关,提示土壤或为其天然宿主。
▸ 病原体的双向传播:土壤⇌人类
土壤与人类之间的病原体传播可能是双向的。一方面,土壤作为天然宿主,病原体可能通过各种途径感染人类;另一方面,人类病原体也可能通过空气、水道或农业实践(如施肥)等生物和非生物媒介从受感染的人群沉积或传播到自然和农业系统中。
• 土壤病原体多处于休眠状态,条件适宜时可经农产品等传播
传播到土壤中的病原体可能以低丰度或休眠孢子的形式存在,在土壤环境中找到替代宿主以生存和增殖;一旦满足传播条件,它们可能通过农产品、野生动物、病媒和城市扩张等各种传播途径重新进入人群,构成健康风险。
研究结果强调,在评估和管理与人类细菌病原体相关的风险时,需要明确考虑土壤因素。如果在地方和区域范围内得到证实,监测栖息在土壤中的人类病原体的流行情况可以为追踪全球疾病负担提供信息,简化流行病学监测,并有助于识别传染病热点。
研究局限性
疾病结果受到许多因素的影响,如人口密度、国家发展水平、社会经济状况和区域医疗质量等,在制定公共卫生政策时也应考虑这些因素。本研究所代表的国家数量有限可能会限制观察;随着数据库的改进,临床结果的预测能力也可能提高。
此外,一些病原体(如肠沙门氏菌和单核细胞增生李斯特菌)通过生食感染人类的途径已经确立,但其他病原体(如结核分枝杆菌)从土壤传播给人类的途径仍然难以捉摸。
基于环境变量(如气候和土壤因素)与人类病原体相对丰度的显著相关性,研究绘制了其在全球土壤中的当前及未来分布,模型可解释58%–88%的空间变异。
结果显示,总体显性病原体、特定病原体(如类鼻疽杆菌和结核分枝杆菌复合群)及关键致病功能(毒素合成、毒力活性和细胞毒性)在撒哈拉以南非洲、南美和东南亚等地区呈高丰度分布。
▸ 预测地图的验证及其应用价值
预测的结核病综合征全球地图显示了与世界卫生组织估计的全球结核病地图可比的模式——大多数结核病病例发生在东南亚、西太平洋和非洲。
• 病原菌分布与其致病人群分布相似
同样,预测的类鼻疽杆菌全球分布图与基于人类和动物感染病例的假鼻锤杆菌全球分布模式一致,类鼻疽在东南亚和南亚、澳大利亚北部、太平洋和印度洋岛国、撒哈拉以南非洲以及中南美洲的许多热带地区高度流行。这些结果为研究方法的稳健性提供了额外支持。
编辑
Xiong C,et al.Cell Host Microbe.2026
值得注意的是,在干旱地区(包括北非、西亚、澳大利亚北部和中部以及美国西部)发现了病原菌多药耐药诺卡菌的相对丰度最高。这与美国诺卡氏菌感染人数在西南部干燥温暖气候中最高的报告相吻合,表明不同病原体对特定气候条件的适应性。
▸ 气候变化下的病原体分布预测
在持续的气候变化下,降水模式和温度正在发生变化,这可能会对人类病原体的分布产生深远影响。
• 未来一些病原体和致病特征可能呈上升趋势
研究分析了病原体相对丰度从当前气候情景到预测的未来气候情景的潜在变化,结果表明在未来的气候情景下,一些关键病原体和致病特征的比例在全球大多数地区呈上升趋势。
例如,结核分枝杆菌复合物和致病群毒素合酶在撒哈拉以南非洲、南美洲、西欧、南亚和东南亚的某些地区呈现出明显的增长趋势。这与最近关于环境中人类病原体丰度总体增加的报告相一致。
这些地图提供了全球主要人类病原体的空间定量信息,填补了关于生活在土壤中的人类病原体的全球分布和环境偏好的关键知识空白。
然而,随着未来气候变化情景下土壤微生物组多样性的预测数据可用,以及更多宏基因组序列(特别是来自采样中代表性较低的地区/国家,如非洲国家)的积累,预测模型可以进一步改进。
总体而言,全球研究揭示了土壤中人类病原体分布的几个关键发现:主要栖息在土壤中的人类病原体的全球分布由气候条件和土壤生物多样性决定,在更潮湿的环境中观察到相对丰度更高。
土壤微生物多样性与这些病原体的流行率(即相对丰度)呈负相关,表明土壤生物多样性在最大限度地降低人类病原体爆发风险方面发挥着关键作用。
这些结果共同强调了土壤生物多样性是一个潜在的重要生态因素,它塑造了栖息在土壤中的人类细菌病原体的全球生物地理学。
▸ 研究的关键启示
这项研究确定了广泛分布在各种生态系统类型中的主要病原体,并揭示了这些病原体的相对丰度与传染病的致病特征和全球死亡率之间的正相关关系。此外,研究展示了主要病原体的环境偏好,并预测了未来全球变化可能如何影响其空间分布。这些发现对未来的研究重点和感染风险的管理具有重要意义:
1.病原体传播途径再评估:多种主要病原体(如类鼻疽杆菌、沙门氏菌和炭疽杆菌)已知可通过环境(如农产品、动物媒介和尘埃)传播,而结核分枝杆菌复合体等则传统上被认为仅经人际传播。研究表明这些病原体可在土壤中长期存活,未来应重点开展与风险管理相关的研究,如其在土壤中的存活与分布机制,以及潜在的土壤—人类传播新途径。
2.健康风险预警与管理:如果土壤中病原体的相对丰度与当地感染率之间具有稳定关系,就可以用于预测特定环境条件下的疾病风险,例如洪水或强降雨后类鼻疽的发生概率。通过持续监测土壤病原体分布与微生物多样性,并结合临床数据,有望建立更加精准和动态的疾病预警体系。
3.综合方法应对多重社会挑战:将气候、土壤与社会经济因素纳入同一分析框架,有助于提升人类病原体风险评估的系统性与前瞻性。相关研究已弥补了关键病原体在全球分布及其与生物多样性关系方面的认知空白,为预测不同气候情景下的人群健康风险提供了重要依据。
从健康管理角度看,对检测结果的理解也需要升级。肠道菌群检测不应只关注“缺乏哪些有益菌”,更应关注是否存在环境来源的病原体,以及这些菌是否反复出现。如果某类病原体持续存在,更可能提示持续暴露,而非单纯治疗不足。因此,定期监测趋势并结合生活环境变化进行分析,比单次检测更具意义。
在更宏观层面,未来公共卫生管理需要加强对土壤微生物的系统性监测,例如建立区域性的土壤微生物数据库与风险地图,对高风险区域进行预警,并在农业生产中规范粪肥处理和灌溉水管理。同时,在城市规划和灾害管理中,应将洪水后土壤病原风险纳入评估体系。
总体来看,对病原菌的控制应从“治疗导向”转向“源头管理”。环境中的土壤是一个关键但长期被忽视的源头,真正有效的健康策略应覆盖三个层面:上游减少环境暴露,中游控制食物污染,下游调节肠道生态。只有在这一整体框架下,才能更有效地降低感染风险并实现长期健康维护。
参考文献:
Xiong C, Delgado-Baquerizo M, Liang J, Wang J, Yan Z, Jensen SO, Gao M, Sáez-Sandino T, Guirado E, Muñoz-Rojas M, Román R, Maestre FT, Singh BK. Soil microbial diversity associates with lower prevalence of human bacterial pathogens across global soils. Cell Host Microbe. 2026 Mar 31:S1931-3128(26)00119-8.
谷禾健康
在当代社会的饮食结构和生活节奏下,腹胀、排气增多以及进食后不适,已经成为越来越高频的人群亚健康反馈。根据以往的经验很多人会把这些情况简单理解为饮食不当、消化不好或肠胃比较敏感,但这样的解释往往只停留在表面。
如今,随着大量的临床研究推动,这类现象其实与肠道内一个重要过程有关——肠道产气。我们吃进去入的食物并不会被完全被身体消化吸收,其中一部分会进入大肠,被肠道菌群进一步分解利用。在这个过程中,微生物会通过发酵产生多种气体,比如氢气、甲烷、二氧化碳等。
在正常情况下,这些气体的产生与排出是一个相对平衡的过程,不会引起明显不适。但当饮食结构、进食速度、压力、疾病状态或肠道菌群组成发生变化时,气体产生和排出平衡就会改变,从而引发腹胀、频繁排气甚至餐后不适等症状。
例如,很多被视为健康的食物,本身恰恰富含可发酵底物,包括豆类中的棉子糖家族低聚糖(RFOs),蔬果和谷物中的果聚糖,以及部分人群无法在小肠充分消化的乳糖。这意味着,这些底物进入不同个体的肠道后,会被不同的菌群结构和代谢通路处理。
因此,从肠道微生态的视角来看,这些日常不适并不只是消化差或吃饭问题,而是身体内部微生物代谢活动的一种外在表现。理解这一点,有助于我们更理性地看待症状,也为通过饮食调整和生活方式干预来改善肠道状态提供了更清晰的方向。
我们先来了解这些常见的核心气体,这也是后续做症状分层和干预判断的基础。
氢气:结肠发酵最典型的气体信号
在肠道主要气体中,氢气(H₂)几乎可以看作结肠发酵最具代表性的代谢信号之一。H₂ 是由结肠细菌对不可消化底物进行代谢后产生的主要气体,而且它仅来源于细菌发酵,并不是宿主自身代谢直接生成的产物。也正因为这一点,H₂ 在理解肠道发酵活跃度时具有很高的指示意义。
在一定条件下,肠道在 24 小时内可产生高达 1 L 的 H₂。到了这个水平,H₂ 已经不只是一个代谢背景值,还可能和腹胀、腹痛、排气增多等症状联系起来。也就是说,H₂ 一方面是正常结肠发酵的组成部分,另一方面也可能成为症状形成的重要推动因素。
哪些菌群参与氢气生成?
从菌群来源看,和 H₂ 生成关系最密切的,主要包括拟杆菌属(Bacteroides)、瘤胃球菌属(Ruminococcus) 、 Roseburia。
此外,Anaerostipes caccae、Clostridium、Eubacterium rectale、Enterococcus、Victivallis vadensis等菌群,也都参与了 H₂ 的生成过程。
人类肠道菌群中存在的主要产气菌
doi.org/10.1016/j.jff.2022.105367
这些菌群有一个共同点:它们能够利用进入结肠、但没有在上消化道被充分处理的底物,尤其是各类可发酵碳水,在厌氧环境中进行分解和发酵。这个过程中,除了生成短链脂肪酸等代谢产物,也会释放出 H₂ 和 CO₂。换句话说,H₂ 的出现,本身就说明结肠内的代谢系统正在运转。
氢气是怎么产生的?
最常见的路径是经典的糖酵解过程(Embden–Meyerhof–Parnas pathway)。肠道细菌将碳水化合物分解为丙酮酸后,会产生大量还原型辅因子,而这些还原力需要被释放和再平衡,这时微生物中的氢化酶(hydrogenases)就会参与进来,推动 H₂ 的形成。
H2还可通过以下机制生成:
1)丙酮酸裂解生成甲酸,随后经甲酸裂解酶代谢;
2)丙酮酸在丙酮酸:铁氧还蛋白氧化还原酶和氢化酶作用下生成H2
所以,H₂ 的生成本质上反映的是肠道厌氧发酵系统在处理底物和转移电子,它是代谢网络维持运行的重要一环。
细菌代谢产生H2、H2S、CH4和CO2的生化途径
编辑
doi.org/10.1016/j.jff.2022.105367
为什么氢气不会一直在肠道里累积?
虽然 H₂ 是主要产气成分之一,但它不会在肠道内无限累积。原因在于,过高的 H₂ 分压会抑制进一步代谢,从热力学上影响细菌继续代谢底物。因此,肠道必须持续把过量 H₂ 移走,整个代谢系统才能维持运行。
肠道中约三分之一的H2被结肠中的其他微生物利用,其余则以肛门排气或呼气形式排出。而承担“耗氢”任务的主要有三类微生物:
这意味着,H₂ 在肠道里更像是一个代谢枢纽。它一头连接上游代谢,一头连接下游的甲烷通路、硫代谢通路和乙酸生成通路。
利用气体的肠道微生物
编辑
doi.org/10.1016/j.jff.2022.105367
氢气升高,通常说明什么?
从功能上看,H₂ 最值得关注的地方,在于它对“代谢负荷”的提示作用。
H₂ 并不只是“会不会胀气”的问题,它更像是一个代谢系统是否处于高负荷状态的功能读数。
也正因为 H₂ 与细菌代谢过程关系非常直接,呼气氢已被广泛用作评估糖类吸收不良和小肠细菌过度生长(SIBO)的重要指标。原因在于,H₂ 直接反映了肠道细菌对未被吸收底物的代谢活动。
二氧化碳:始终处在代谢主通路中
二氧化碳也是结肠代谢的主要气体之一
在讨论肠道产气时,二氧化碳(CO₂)往往没有氢气和甲烷那么受关注,但从代谢过程看,它一直是结肠细菌在结肠中对膳食底物进行代谢代谢时产生的主要气体之一。
和 H₂ 一样,CO₂ 也是菌群处理未被上消化道充分吸收底物后的结果,因此它本身就处在肠道代谢主通路中。
哪些菌群参与了二氧化碳生成?
参与膳食碳水发酵并产生 CO₂ 的菌群,主要仍然集中在厚壁菌门和拟杆菌门两大类群中。
也就是说,CO₂ 的产生与结肠中最主要的发酵菌群密切相关,和 H₂ 的菌群背景有很大重叠。
二氧化碳是怎么产生的?
CO₂ 的产生与结肠发酵中最基础的碳流动和能量代谢过程直接相关。只要结肠内的发酵在持续,CO₂ 就会持续生成。
二氧化碳会如何被处理?
和其他肠道气体相比,CO₂ 的一个重要特点是:相当一部分会被肠黏膜吸收。研究指出,大多数 CO₂ 会经结肠黏膜被动吸收,进入循环后再通过呼吸排出体外。
除此之外,未被吸收的 CO₂ 也可以随排气排出,或者被肠道内其他微生物继续利用。
在后续代谢中,CO₂ 还会继续参与两类重要通路:
所以,CO₂ 在肠道里既是代谢产物,也是后续代谢网络中的重要底物。
二氧化碳升高,通常说明什么?
从肠道代谢角度看,CO₂ 的持续生成说明结肠代谢通路处于活跃状态,尤其与碳水底物的厌氧分解密切相关。它本身虽然不如 H₂ 和 CH₄ 那样常作为单独指标被强调,但在代谢网络中,CO₂ 一直是一个基础节点:
硫化氢:量不大,但值得关注
和 H₂、CO₂、CH₄ 相比,硫化氢(H₂S)在肠道总气体体积中的占比并不高,但它的生物学意义很强。原因在于,H₂S 不只是一个代谢产物,它同时还是一种具有信号作用和细胞效应的含硫小分子。我们来看看,H₂S 来自哪条通路、处在什么部位、达到什么浓度,以及宿主能否把它及时解毒和清除。
人类大肠和粪便中的 H₂S 浓度大约在 0.17–0.38 mmol/L。
哪些菌群参与了硫化氢生成?
肠道内负责生成 H₂S 的核心菌群是硫酸盐还原菌(sulfate-reducing bacteria, SRB)。
其中最常见、最典型的代表是Desulfovibrio piger。此外,Desulfovibrio fairfieldensis、Desulfovibrio desulfuricans、Desulfobulbus、Desulfomicrobium、Desulfomonas 等,也都属于与 H₂S 生成相关的菌群。
SRB 在结肠中的数量范围大约可达 10³–10¹¹ CFU/g 。其中 Desulfovibrio 属是人类结肠中最主要的一类 SRB。
不过,现有研究也提示,肠道 H₂S 的来源并不只有 SRB。Fusobacterium 这类菌同样能够参与 H₂S 生成。
此外,卡拉胶(carrageenan) 等硫酸化多糖也可以提供相关底物。研究还指出,粪便 H₂S 升高与红肉摄入增加存在相关性。
硫化氢是怎么产生的?
最经典的一条路径,是 SRB 在厌氧环境下利用 H₂ 作为电子供体、利用硫酸盐作为末端电子受体,通过异化硫酸盐还原作用,最终生成 H₂S。
换句话说,这条路径本质上是一个典型的耗氢分流过程:上游发酵菌持续产出 H₂,下游 SRB 再把这部分 H₂ 转入硫代谢通路。
另一条重要路径,与含硫氨基酸代谢有关。像 Fusobacterium nucleatum 这类菌通过半胱氨酸脱硫酶将L-半胱氨酸等含硫氨基酸转化为 H₂S、丙酮酸、氨。
也就说,H₂S 的生成至少同时连接了两条线索:
H₂S 的问题,关键在浓度和部位
H₂S 的作用具有明显的浓度依赖性。
研究还表明,正常情况下结肠本身具有相当强的 H₂S 解毒能力,可将 H₂S 氧化为毒性更低的代谢物,例如亚硫酸盐。这意味着,结肠并不是被动暴露于 H₂S,而是长期处在“产生—解毒—利用”之间的动态平衡里。
问题通常出现在两个场景:
一是菌群失衡导致 H₂S 暴露增加;
二是暴露位置前移。
小肠对 H₂S 的解毒能力约只有结肠的 1/20。这意味着,一旦菌群失衡或 SIBO 让 H₂S 暴露更多发生在小肠,同样的 H₂S 负荷,其后果可能就会完全不同。
编辑
doi: 10.3390/ijms2607334
H₂S 为什么更值得放在黏膜环境里理解?
和 H₂、CO₂ 主要反映发酵是否活跃不同,H₂S 更值得放在黏液层—上皮屏障—局部炎症这个框架里理解。
现有研究提示,较高浓度的 H₂S 可抑制线粒体呼吸、影响 ATP 生成,并改变细胞内氧化还原状态;同时,它还会影响黏液层稳定性,增加上皮暴露风险。
——炎症性肠病
研究普遍发现,IBD 患者肠道内 H₂S 暴露增加,SRB 相关菌群也更活跃。IBD 患者结肠腔内 pH 往往高于健康对照,这会为 SRB 提供更有利的生长环境。
与此同时,研究表明,H₂S 还会进一步影响结肠能量代谢。H₂S 可干扰丁酸盐氧化,削弱结肠细胞对丁酸的利用。考虑到丁酸本来就是结肠上皮的重要能量来源,这种变化会让黏膜环境更脆弱,也更容易进入炎症状态。
——结直肠癌
现有研究已经提示,多种 H₂S产生菌 与肿瘤发生发展有关,尤其是 Fusobacterium nucleatum 这类既参与肿瘤微环境、又可参与 H₂S 生成的菌。
H₂S 在肿瘤发生中可能参与多个过程,包括细胞代谢调节、血管生成、细胞周期调控以及 DNA 损伤相关效应。
硫化氢升高,通常说明什么?
从肠道代谢角度看,H₂S 升高通常提示的不是单纯“产气增多”,而是以下几件事可能同时存在:
所以,H₂S 更适合放在“耗氢分流—硫代谢负荷—黏膜环境风险”这条线上看。
氨:常被忽略的蛋白发酵代谢产物
氨主要来自氨基酸脱氨作用
和前面几类气体相比,氨(NH₃)在肠道产气讨论里经常被忽略,但在肠道代谢层面,它同样是一个重要信号。
研究提到,NH₃ 主要由结肠细菌对氨基酸进行脱氨作用后产生。它和 H₂、CO₂、CH₄ 这类主要以气体形式存在的成分不同,NH₃ 在胃肠道内主要溶解于液相环境中。
研究表明,人类粪便中检测到的 NH₃ 浓度大约在 10 – 30 mM,而且随着蛋白质摄入增加,NH₃ 的排泄量也会增加。
氨和哪类底物关系更密切?
如果说 H₂ 和 CO₂ 更直接对应碳水代谢,那么 NH₃ 更直接对应的是蛋白质及氨基酸代谢。它的生成意味着,进入结肠的含氮底物正在被菌群进一步分解。
也就是说,NH₃ 更多反映的是肠道内蛋白发酵这一端的代谢活动。
它不是典型的“排气体积贡献者”,但在结肠代谢环境中,NH₃ 所代表的含氮代谢负荷值得注意。
氨升高后,会对肠道产生什么影响?
NH₃ 可通过改变肠道细胞形态和中间代谢,对细胞产生多方面毒性作用,包括抑制 DNA 生物合成以及缩短细胞寿命。
此外,一些研究还发现,较高水平的 NH₃ 可损伤结肠黏液层,并降低结肠细胞的寿命;在动物研究中,升高的 NH₃ 还与抑制结肠细胞对丁酸的氧化利用有关。
NH₃ 的问题在于它会直接影响结肠上皮细胞所处的代谢环境。
氨升高,通常说明什么?
从肠道代谢角度看,NH₃ 升高通常提示的是蛋白发酵负荷增加,以及结肠内含氮底物代谢活跃。它反映的重点在肠道局部代谢环境是否承受了更高的含氮代谢压力。NH₃ 更适合放在“蛋白发酵—黏膜环境—上皮代谢”这条线上看。
近年的研究还开始把 NH₃ 的意义从肠道局部环境延伸到更广的系统轴线。已有系统综述和 Meta-analysis 提出,肠道内源性 NH₃ 与 H₂S 可能还与男性生殖健康相关。
这项荟萃分析发现,体内氨(NH3)和/或硫化氢(H2S)与对男性生育有益的乳杆菌呈负相关,而氨和硫化氢与对男性生育有负面影响的拟杆菌属呈正相关。对乳杆菌属和拟杆菌属水平与氨进行比较的荟萃分析显示,结果具有统计学意义(p<0.001)。
不过,这部分内容目前可视为前沿方向,而不是已经定论的临床结论。
甲烷:更值得关注的是肠道动力变化
在肠道主要气体中,甲烷(CH₄)的来源和 H₂、CO₂ 不太一样。CH₄ 主要不是由普通细菌直接产生,而是由产甲烷古菌(methanogens)利用 H₂ 作为电子供体,将 CO₂ 还原后生成。
甲烷的出现同时说明肠道内前端已经存在 H₂ 和 CO₂ 的持续生成,并且下游存在活跃的甲烷生成通路。
哪些菌群参与了甲烷生成?
人类胃肠道内最主要的产甲烷微生物属于 Euryarchaeota。其中,最常见、最重要的代表是 Methanobrevibacter smithii。
此外,Methanosphaera stadtmanae 和 Methanobrevibacter oralis 也被认为参与了 CH₄ 的生成。
研究还提到,人体粪便中产甲烷古菌的丰度差异很大,可从几乎检测不到到 10⁹ CFU/g stool 不等;而只有当其数量达到大约 10⁷ 时,呼气中才更容易检测到 CH₄。
甲烷生成会带来什么代谢后果?
甲烷生成有一个很重要的特点:它能够明显减少总气体摩尔数。对应反应为:
CO₂ + 4H₂ → CH₄ + 2H₂O
也就是说,原本的 5 mol 气体,最终会变成 1 mol 气体。从这个角度看,甲烷生成实际上会降低总体气体体积。
甲烷相关问题的重点,往往在于它改变了气体代谢的去向,也改变了肠道内 H₂ 的分流格局。
从机制上看,这是一条非常典型的耗氢通路。
也就是说,上游发酵菌把未被小肠吸收的底物分解后,产生 H₂、CO₂ 和短链脂肪酸;下游产甲烷古菌再把 H₂ 和 CO₂ 进一步转入甲烷通路。
这一点很关键。因为 H₂ 在肠道里并不会无限累积。研究表明,较高的 H₂ 分压会抑制发酵菌继续代谢底物,并影响 NADH 再氧化以及后续发酵过程。换句话说,把 H₂ 持续移走,本身就是维持发酵系统继续运转的一部分。 甲烷生成正是这套移走 H₂的方式之一。
编辑
甲烷和便秘经常一起出现
较高水平的 CH₄ 与肠道动力减慢相关,并且和便秘,尤其是 IBS-C(便秘型肠易激综合征) 的关系更为密切。
一些研究还显示,CH₄ 可增强肠道收缩活动,同时减慢肠内容物推进速度。
也就是说,甲烷相关问题的重点,并不主要体现在总气体体积上,而更多体现在动力学后果上。
甲烷可能不仅影响动力,也和能量提取效率有关
一项研究发现,高甲烷产生者并没有表现出更高的 SRB 或 产乙酸菌活性下降,也就是说,甲烷通路未必是在压制其他耗氢通路;但高甲烷产生者却表现出更高的血清丙酸水平,并且在高纤维、全食物模式饮食下,具有更高的宿主可代谢能量(metabolizable energy, ME)。
进一步的网络分析还发现,和 CH₄ 生成正相关的,不只是 Methanobrevibacter smithii,还包括一组更适合降解膳食纤维、发酵纤维降解产物并生成丙酸的菌群,例如 Bacteroides caccae、Bifidobacterium adolescentis、Coprococcus、Eubacterium、Lachnospira、Prevotella copri、Roseburia faecis 等。
与甲烷产生率呈正相关的微生物
编辑
doi: 10.1093/ismejo/wraf103
这提示,甲烷有时更像是一个微生物协同网络的标志:它背后可能对应的,是一整套更擅长处理纤维底物、维持发酵链条、促进短链脂肪酸生成和吸收的菌群结构。
甲烷升高,通常说明什么?
从肠道代谢角度看,CH₄ 升高通常提示的是:
从实际理解上看,CH₄ 更适合放在“耗氢通路—肠道动力—微生物能量提取效率”这条线上看。提示气体代谢结构和肠道动力状态可能已经发生了变化。
上一章节我们了解到,H₂、CO₂、H₂S、NH₃、CH₄ 这些产物,来源不同、代谢路径不同,对宿主的影响也不同。也正因为如此,临床上看起来都叫“腹胀”“排气多”或“吃完不舒服”,背后的机制并不一定相同。
气体本身只是结果,真正决定症状和结局的,是气体类型、代谢去向以及宿主对这套代谢输出的承接能力。
肠道气体本身并不一定带来症状,关键在于能否被及时清除
肠道菌群发酵产生气体,本身并不等同于一定会出现不适。研究提到,发酵过程中产生的气体主要有三种去路:
一项研究显示,大约 77% 的微生物气体会通过前两种方式被清除,以排气形式离开的约占 23%。
这意味着,对多数健康人来说,产气和清除之间通常可以维持相对稳定的平衡。气体生成本身是结肠发酵的一部分,问题往往出在这套清除机制是否还能及时承接当前的发酵输出。
为什么有些人更容易腹胀、排气多?
主诉频繁腹胀和排气增多的人群,往往存在肠道气体清除受损。也就是说,他们的问题不一定只是产气更多,还可能是气体在肠道内停留得更久、清除得更慢。
另一要点是,功能性胃肠道症状患者对气体负荷的耐受阈值往往更低。
研究提到,这类人群相对正常人可以耐受的气体量,也更容易出现腹胀、胀满感和不适。也就是说,同样的气体负荷,在不同宿主背景下,主观症状的强弱并不一致。
这一点也和近期的干预研究相呼应。
一项随机、双盲、安慰剂对照试验纳入了 350 名自述存在腹胀/消化不良症状的健康成年人,连续 6 周给予多菌株合生元或安慰剂。结果显示,干预组不仅腹胀和胀气评分下降,腹部不适也显著改善,同时便秘相关不适和排便规律性也有所改善。
研究者指出,这类变化可能并不只是来自单纯产气减少,还与胃肠动力改善、内脏高敏感缓解以及肠道屏障功能支持有关。
这种差异在实际菌群报告中也很常见。看起来都属于产气相关问题,但进一步拆开后,背后的代谢结构并不一样。
比如在谷禾的一些样本中,除了主诉腹胀或排气增多之外,还可以直接看到肠道产气本身已处于超标水平;进一步拆开后,又伴随对甲酚过多、丁酸盐不足、Bacteroides fragilis 增殖,以及腹胀相关的 Bacteroides、Clostridium、Proteobacteria 等线索。
编辑
<来源:谷禾肠道菌群检测数据库>
这样的结果提示,问题往往不只是气体多了,而更像是发酵负荷升高、腐败代谢增强、保护性代谢物不足和菌群生态失衡同时存在。也正因为如此,同样表现为腹胀或排气增多,背后的处理逻辑并不一样。
气体的产生位置和产生速度,也会影响症状表现
除了总量和清除能力,气体在肠道内的产生位置和产生速度同样重要。研究指出,肠道内气体的数量或分布位置出现异常,都可能导致不良症状。
例如,当碳水化合物在小肠内被细菌过度发酵时,更容易引起明显的腹胀和腹痛,这也是小肠细菌过度生长相关症状的重要机制之一。
像RFOs(raffinose family oligosaccharides)这类发酵速度较快的底物,更容易因为短时间内迅速产气,而增加肠道清除负担,从而放大腹胀等症状。
注:RFOs是一类由多个单糖(通常是葡萄糖、果糖和半乳糖)通过糖苷键连接而成的低聚糖。在植物中广泛存在,尤其是在豆类、十字花科蔬菜(如卷心菜和花椰菜)、全谷物和某些根茎类蔬菜中。
有些“产气食物”在持续摄入后,症状反而会减轻
研究提出,肠道清除气体的能力并不是固定不变的,而是可以被饮食改变的。
例如,在刚开始摄入GOS这类短链、发酵较快的非消化性碳水时,总气体体积可增加 37%;但在连续摄入两周后,气体体积又会下降回基线水平。与此同时,在到达肛门前就被清除掉的气体比例,还呈现上升趋势。
这说明,持续摄入某些产气性食物后,肠道菌群的耗气能力和宿主对气体的处理能力可能会发生适应。一些所谓“容易产气”的食物,并不一定会长期维持同样强度的不适,症状程度可能随着时间而改变。
在炎症性肠病中,硫化氢相关信号更值得警惕
临床研究和实验研究都提示,菌群产生的 H₂S 与 IBD,尤其是溃疡性结肠炎(UC),存在关联。体外研究发现,UC 患者粪便样本中的硫酸盐还原菌数量高于健康对照,同时 H₂S 生成水平也更高。
还有研究发现,去除富含含硫氨基酸的食物,如 牛奶、鸡蛋和奶酪,在部分溃疡性结肠炎场景中曾显示出一定治疗意义。这提示,H₂S 所对应的也可能反映结肠局部代谢环境的改变。
甲烷菌和硫酸盐还原菌,与结直肠癌有关
多项研究还发现,甲烷菌和硫酸盐还原菌相关通路与结直肠癌(CRC)存在关联。
结直肠癌患者中,CH₄ 排出的发生率高于健康对照;与此同时,较高水平的 H₂S 也出现在结直肠癌高风险人群和溃疡性结肠炎患者中。
还有研究发现,在结直肠癌患者活检组织中,负责 H₂S 解毒的酶硫代硫酸盐硫转移酶丰度较低。这些结果提示,肠道气体及其相关代谢通路的意义,可能已经不只是功能症状层面,还涉及肠道局部病理环境的变化。不过,目前这类关联背后的分子机制仍有待进一步研究。
我们知道导致肠道气体的原因很多,但食物是影响产气症状的主要因素之一。食物之所以会影响肠道产气,关键是其中有哪些成分没有在上消化道被充分消化吸收,最终进入结肠,成为菌群发酵的底物。
与肠道气体关系最密切的食物类型,主要包括豆类、部分蔬菜和水果、全谷物、乳制品。这些食物虽然来源不同,但在机制上有一个共同点:都可能为结肠菌群提供可发酵底物,从而增加气体生成。
豆类——RFOs
豆类,包括干豆、扁豆、豌豆等,是很多人日常饮食中的重要组成部分。它们通常脂肪含量较低,同时富含蛋白质、维生素、矿物质和膳食纤维,因此在营养学上一直被视为具有较高价值的食物。
然而,尽管具有上述优点,许多消费者仍避免食用豆类,尤其是多种菜豆,原因是担心排气过多和胃部不适。
豆类引起的排气增加往往出现在摄入早期
有报道指出,部分人在饮食中加入豆类后,尤其是纤维摄入本就偏低的人,排气增加是预期结果。然而,有报道指出,随着更频繁地摄入豆类,排气会有所减少。
在一项随机对照试验中,50%的健康受试者报告在食用斑豆或烤豆的第一周内排气增加,但第二周后这一比例降至38%。
此后,报告胀气症状的受试者百分比在第6~12周持续下降至15%~23%。
在另一项随机对照试验中,评估了连续28天食用豆类(鹰嘴豆、扁豆和青豆)的影响。在干预早期,食用每种豆类都会引起胀气显著增加,但在后期胀气水平显著下降。
基于以上这些研究,排气的频率取决于个体食用豆类的频率,且个体之间的反应可能存在显著差异。
豆类中的关键底物是 RFOs
研究认为,豆类与肠道气体关系密切,主要与其中较高含量的膳食纤维和RFOs 有关。
研究指出,人类缺乏足够的 α-galactosidase 来降解这类寡糖,因此 RFOs 不能在小肠被充分消化吸收,而会进一步进入结肠,被菌群发酵,并在这一过程中产生气体。也正因为如此,豆类摄入后出现排气增加,在机制上是可以解释的。
不同豆类中的 RFOs 含量存在差异
扁豆、青豆、黄豆、豇豆、红芸豆等都属于 RFOs 含量相对较高的代表,不同种类之间在棉子糖、水苏糖、毛蕊花糖的含量上存在明显差异。
这说明,豆类引起的肠道产气并不是完全一致的,不同品种、不同底物组成,都会影响进入结肠后的发酵负荷。
编辑
加工方式可能影响豆类的产气潜力
除了原料本身的差异,综述还提到,一些加工处理方法可能降低植物中的 RFOs 含量,例如挤压、浸泡、高压灭菌、酶处理、煮沸。这些方法在不同程度上都有助于减少 RFOs,因此也被认为可能降低后续发酵产气。
从应用角度看,这部分研究的意义比较明确:豆类相关问题并不一定只能通过回避摄入来处理,底物含量本身和加工方式同样会影响最终的耐受性表现。
蔬菜和水果:果聚糖和多元醇
食用富含果聚糖的蔬菜后,人体可能会出现肠胃胀气。在蔬菜和水果中,与肠道气体关系更密切的是其中所含的某些可发酵碳水化合物。主要包括两类成分:一类是果聚糖,另一类是多元醇。
蔬菜和水果中的果聚糖属于菊粉型,由一个至多个与蔗糖的果糖部分相连的2→1连接的β-果聚糖基单元组成。此类果聚糖中最简单的物质是1-蔗果三糖,即β-果聚糖基-(2→1)-β-果聚糖基-(2→1)-α-吡喃葡萄糖苷。菊粉型果聚糖的聚合度通常在3~约60之间。
菊粉和低聚果糖(FOS)在蔬菜中含量丰富,如洋蓟、芦笋、菊苣根、大蒜、洋葱、蒲公英叶、韭菜等。
编辑
果聚糖在小肠中无法被消化,在结肠中发酵后产生过多肠道气体
果聚糖不能在小肠被消化吸收,因此会进入结肠,被菌群进一步发酵,从而增加气体生成。
最近的两项研究探讨了食用含菊粉食物对胃肠道症状的影响。排气增加是健康志愿者中最常见的胃肠道症状之一。
两项研究的结果均显示,健康志愿者在食用富含菊粉的饮食后,报告的最常见的胃肠道症状是肠胃气胀加重。
在另一项研究中,据报告,在连续5周食用富含低聚果糖的饮食期间,低聚果糖会导致肠道气体产生增加。
多元醇也是蔬菜和水果中重要的产气相关成分
多元醇天然存在于一些水果和蔬菜中,也被广泛作为无糖甜味剂用于口香糖和饮料中。
FDA批准的多元醇包括甘露醇、山梨醇、木糖醇、异麦芽酮糖醇、乳糖醇、麦芽糖醇、赤藓糖醇、氢化淀粉。
一项研究评估了山梨醇吸收不良与胃肠道症状之间的关系,该研究让7名健康参与者摄入不同剂量的山梨醇。在大多数受试者(7人中的4人)中,仅摄入5克山梨醇就与气体显著增加相关,而大多数受试者在摄入20克山梨醇后出现了严重症状(气体、腹胀、痉挛和腹泻)。
同样,在另一项包含10名健康志愿者的研究中,与摄入低剂量甘露醇相比,摄入含有高剂量甘露醇的水溶液导致的副作用发生率最高,包括肠胃气胀、腹泻和腹痛。
多元醇所带来的不适程度不仅与成分本身有关,也与摄入剂量密切相关。
蔬菜和水果相关的不适,本质上仍然是底物问题
从现有研究看,蔬菜和水果与肠道气体的关系,主要还是通过其中的果聚糖和多元醇来体现。
全谷物——果聚糖
全谷物常被视为健康食物,但并不意味着所有人都有同样的耐受性
小麦、玉米、大麦、黑麦、燕麦等谷物是世界大多数人口主要依赖的主食。与此同时,营养学和公共健康建议通常鼓励更多摄入全谷物而不是精制谷物。
《2020–2025美国膳食指南》建议每天至少摄入 3 盎司(约85克)全谷物,这主要基于全谷物与代谢健康相关的益处。
不过,这并不意味着全谷物在所有人群中都具有同样的胃肠耐受性,研究指出,全谷物虽然含有部分可发酵膳食纤维和抗性淀粉,但其中更值得关注的一个成分,是果聚糖。
全谷物中的果聚糖——与产气关系更密切的底物
谷物中的果聚糖与蔬菜水果中的果聚糖并不完全相同。前者主要属于左聚糖型,其结构特点是 β-呋喃果糖基单元通过 (2→6) 键连接到蔗糖分子上。这类果聚糖在谷物中的聚合度可达到约 90(说明它们属于结构相对复杂、可进入结肠发酵系统的一类底物)。
大量研究已将全谷物摄入与排气增加联系起来。
在一项非对照研究中,55%的IBS患者报告麸皮加重了其胃肠道症状,包括产气相关主诉。
关于麦麸的对照试验也报道,与安慰剂相比,参与者出现更多排气和腹部不适。
此外,Vuholm等考察了全麦和全黑麦对胃肠道症状的影响,发现摄入这些全谷物与健康志愿者排气增加显著相关。
部分人群需要关注FODMAPs
尽管小麦及其他谷物中的果聚糖等可发酵低聚糖、二糖、单糖、多元醇(FODMAPs)普遍被认为会在IBS患者中引起严重胃肠道症状,但也有研究指出,许多非乳糜泻性麸质敏感者实际上可能对小麦中的FODMAPs而非麸质敏感。
加工方式可能影响全谷物的产气潜力
已有研究开始评估不同工艺对谷物中果聚糖的影响。据推测可减少肠道气体及其他胃肠道症状。
一项研究评估了不同酸面团酵母菌株在96小时发酵过程中降解小麦粉中果聚糖的能力。发酵后,与传统面包酵母S. cerevisiae分离株相比,从澳大利亚酸面团中分离得到的Saccharomyces cerevisiae和Torulaspora delbrueckii能显著降低小麦粉中的果聚糖含量。
另一项研究还考察了,植物乳杆菌与酿酒酵母延长发酵时间在黑麦面团发酵过程中降解黑麦面包果聚糖的潜力。发酵3小时后,作者注意到,与仅用面包酵母发酵的面包相比,采用植物乳杆菌和酵母发酵的黑麦面包中果聚糖含量显著下降。
也就是说,原料本身之外,发酵工艺和加工方式同样会影响最终进入结肠的发酵底物负荷。
全谷物相关问题,更适合放在底物耐受性框架中理解
这里还可以区分两个层面来看:
前者有时可以结合菌群功能线索辅助理解,后者则更多与宿主本身的肠道动力、气体清除和感觉敏感性有关。
从干预角度看,全谷物相关不适更适合先放在果聚糖耐受的框架里理解,再进一步结合加工方式、摄入剂量和摄入频率做调整;如果同类底物反复诱发症状,后续也可以结合饮食记录、症状出现的时间窗,包括菌群线索,进一步判断问题更偏向发酵太强,还是本身更不耐受。
编辑
doi.org/10.1016/j.jff.2022.105367
乳制品——乳糖
乳制品相关不适,核心在于乳糖处理能力
牛奶和其他乳制品是加重胃肠道症状的食物之一,尤其是在全球相当一部分成年乳糖酶缺乏人群中。
乳糖是哺乳动物乳汁中特有的碳水化合物,人乳中含量约为7.2 g/100 ml,牛乳中约为4.7 g/100 ml。乳糖本身并不会直接引起气体问题,影响后续结局的是它能否在小肠被及时水解。
编辑
乳糖能否被消化,取决于乳糖酶活性是否足够
乳糖酶是负责水解乳制品中乳糖的酶。乳糖需要依赖乳糖酶水解为葡萄糖和半乳糖后,才能在小肠被吸收。
在大多数哺乳动物中,乳糖酶活性在儿童期较高,但会随年龄增长迅速下降。在人群中,仅约 30% 的人群在成年后仍保持乳糖酶持续表达,但这种乳糖酶持续性在不同人群中的分布差异很大。
这意味着,对相当一部分成年人来说,乳糖并不能在小肠被充分处理,而更容易进入结肠。
未被消化的乳糖会进入结肠并被菌群发酵
研究指出,当乳糖没有在小肠被充分水解为单糖时,它会进入大肠,成为菌群可利用的发酵底物。随后,肠道菌群会对其进行代谢,并产生相关气体。乳糖酶缺乏患者因结肠内乳糖发酵而出现排气增加。
乳糖进入结肠后,菌群组成会影响后续的代谢走向。某些菌群,尤其是双歧杆菌属和乳杆菌属,具有β-半乳糖苷酶活性,能够利用乳糖并完成进一步分解;同时,这两类菌更倾向于产生短链脂肪酸,而不像其他部分异型发酵菌那样更容易形成较高的氢气和甲烷输出。也就是说,乳糖进入结肠之后,会不会形成更明显的产气表型,和菌群如何处理这部分底物也有关系。
益生菌可能缓解乳糖不耐受症状的机制
编辑
doi: 10.1007/s10482-026-02278-x
部分人群对乳糖的耐受,可以随着菌群适应而变化
在乳糖不耐受人群中,长期、规律地接触乳糖后,肠道菌群可能发生适应性变化。
这种变化通常表现为具有β-半乳糖苷酶活性的乳糖发酵菌增加,例如双歧杆菌属和乳杆菌属丰度上升,同时结肠对乳糖的处理效率提高,呼气氢排出下降,症状减轻。
基于证据的、对乳糖不耐受有益的益生菌菌株
编辑
doi: 10.1007/s10482-026-02278-x
如果把肠道产气仅仅理解为吃了某类食物之后会不会胀,那么临床和健康管理层面的处理往往容易停留在经验性忌口、临时回避和泛化建议上。但从现有研究看,肠道产气所连接的并不只是食物和症状,还包括底物进入上消化道后的处理效率、结肠阶段的菌群代谢方式、不同耗氢通路的分流方向,宿主本身的动力和耐受状态等。这意味着,产气相关问题更适合被理解为一个可分层、可追踪、可干预的功能表型。
未来关于产气相关问题的管理,会包括对具体底物、具体通路和具体耐受阈值的识别。进一步判断:究竟是哪一类底物在反复诱发症状,进入结肠后被怎样的菌群结构处理,又是在什么剂量和什么摄入方式下开始越过个体的耐受边界。
肠道产气相关问题也越来越值得放到多维评估框架里看。饮食记录能帮助识别底物来源,症状时间窗能帮助判断反应时序,呼气试验能帮助捕捉功能性输出,而菌群相关信息则更适合帮助理解:个体的肠道,当前更偏向哪一种发酵和耗氢模式,是否已经出现了保护性代谢物不足、腐败代谢增强,或者硫代谢相关通路偏移。也就是说,菌群检测帮助我们把原本笼统的症状,推进到更具体的代谢理解和功能识别。
总的来说,肠道产气更像是肠道持续暴露自身代谢状态的一种外显方式。把这些信号读得更清楚,就更接近下一阶段更精细的营养干预和功能管理。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Hao Y, Du X, Cai C, Zhao Y, Ren Y. Ammonia and hydrogen sulfide – new insights into gut microbiota and male infertility through meta-analysis. Front Cell Infect Microbiol. 2025 Jan 6;14:1449453.
Dirks B, Davis TL, Carnero EA, Corbin KD, Smith SR, Rittmann BE, Krajmalnik-Brown R. Methanogenesis associated with altered microbial production of short-chain fatty acids and human-host metabolizable energy. ISME J. 2025 Jan 2;19(1):wraf103.
Birg A, Lin HC. The Role of Bacteria-Derived Hydrogen Sulfide in Multiple Axes of Disease. Int J Mol Sci. 2025 Apr 3;26(7):3340.
Chen B, Zhang Y, Du L, Jin J, Dai N. Advances in the mechanism of low FODMAP diet in the treatment of irritable bowel syndrome: a review. Front Nutr. 2026 Mar 12;13:1719048.
Allegretti JR, Kassam Z, Kelly CR, Grinspan A, El-Nachef N, Van Den Elzen C, Jäger R, Feuerstadt P. A Randomized, Placebo-Controlled Trial Evaluating Multi-Species Synbiotic Supplementation for Bloating, Gas, and Abdominal Discomfort. Nutrients. 2026 Jan 14;18(2):255.
Perets TT, Gingold-Belfer R, Dickman R. Lactose intolerance and probiotics: from pathophysiological mechanisms to clinical applications. Antonie Van Leeuwenhoek. 2026 Mar 17;119(4):67.
Bin Waqar SH, Rehan A. Methane and Constipation-predominant Irritable Bowel Syndrome: Entwining Pillars of Emerging Neurogastroenterology. Cureus. 2019 May 28;11(5):e4764.
Erasme Mutuyemungu, Mukti Singh, Sean Liu, Devin J. Rose, Intestinal gas production by the gut microbiota: A review, Journal of Functional Foods,Volume 100, 2023
谷禾健康
恭喜!
杭州谷禾信息技术有限公司检测实验室
注册号:CNAS L23010
【新突破】
谷禾16S rRNA 扩增子检测项目正式通过中国合格评定国家认可委员会 CNAS 认可,纳入实验室认可范围。
【深扎根】
此前谷禾获认可的宏基因组项目(详情:杭州谷禾检测实验室获CNAS国家认可,微生物检测迈向更高台阶),顺利通过 CNAS 首次监督评审。
关于CNAS
CNAS 是“中国合格评定国家认可委员会”(China National Accreditation Service for Conformity Assessment)的英文缩写,是由国家认证认可监督管理委员会批准设立并授权的国家认可机构,统一负责对检测实验室、校准实验室、认证机构等合格评定机构进行认可。获得 CNAS 认可,表明该实验室具备按照相关国际和国家标准开展检测活动的技术能力和管理水平,其出具的检测报告具有权威性和公信力。
在我国合格评定体系中,CNAS 认可代表的是对机构能力的第三方评价。对于检测实验室而言,是围绕实验室的管理体系、技术能力、人员能力、设备设施、方法确认、质量控制、结果有效性、持续改进能力等方面进行系统评审。
CNAS 认可体系强调实验室活动的公正性、独立性和结果有效性。检测结果是否客观,检测过程是否受控,人员是否能够避免不当压力和利益干扰,都是实验室质量体系中的重要内容。
因此,实验室通过 CNAS 认可,意味着其在获认可范围内具备按照相应认可准则开展检测活动的能力,也意味着检测过程和结果具备更清晰的规范性、可追溯性和可信基础。
同时,CNAS 与国际认可互认机制相衔接,在相关互认范围内,有助于推动检测、校准、检验等合格评定结果在不同国家和地区之间获得更广泛的接受。
对高通量测序检测实验室来说,CNAS 认可不仅是一项资质成果,更是一种来自国家认可体系的能力确认,也是一份面向科研、产业与真实应用场景的可信承诺。
据目前公开认可信息及相关项目范围比对
谷禾获认可的16S rRNA 扩增子检测项目
为国内高通量测序检测类公司中
首个通过 CNAS 认可的同类项目
从宏基因组检测项目首次获得认可
到如今顺利通过监督评审;
从实验室基础质量体系建设
到16SrRNA扩增子检测项目纳入认可范围;
这是一份属于谷禾团队全体成员的喜报
更是一段长期秉持“工匠精神”
日常工作的阶段性回响
也意味着谷禾检测实验室在微生物组检测
和高通量测序检测能力建设的道路上
再次迈出了坚实且具有行业引领性的一步
16S rRNA 扩增子检测,是一条由多个高精细环节环环相扣组成的完整技术链路。通过对微生物特征基因片段进行富集、高通量测序和深度生物信息学分析,能够帮助洞察样本中微生物群落的物种组成、多度分布、多样性特征及结构演变。
然而,正因为这条技术链路横跨了分子生物学、微生态学与计算机信息学等多个学科,其全生命周期的复杂性与不确定性也呈指数级上升。
系统性鸿沟:标准化不足带来的数据可比性挑战
在当今蓬勃发展的微生物组研究领域,方法学标准化不足所导致的研究间可比性差,已成为横亘在科学探索与真实世界应用之间的一道系统性鸿沟,这不仅是对宝贵科研资源的巨大损耗,更是掣肘了微生态研究成果向产业化与临床端安全转化的核心通道。
这就要求实验室不仅在技术层面知道怎么做,更要在体系管理层面清晰、透明、有据可查。
比如说,数据质控阈值是如何经过数理统计学验证的,异常结果出现时的根本原因有没有相应的调查机制,涉及流程、软件版本或关键参数调整时,是否经过必要的技术确认等。
这些都构成了高通量测序检测项目的质量门槛。
谷禾的选择:以标准化支撑检测长期稳定
面对这一阻碍行业健康发展的底层痛点,谷禾健康团队深知,建立贯穿生命科学检测全周期的标准化操作规范(SOP)和严密质控体系,是让检测数据具备稳定性、可追溯性的关键,也是精准指导下游靶向干预、产品研发、功效评价,以及迈入临床级应用的关键基石。
为此,我们历经多年在底层技术上的持续深耕与无数次真实样本的反复打磨,系统性重构并确立了一套严苛、稳定的微生物高通量测序(涵盖16S rRNA及宏基因组)全流程检测技术规范。
正因如此,CNAS 认可对谷禾而言,不是一次单点项目申报,也不是把既有流程简单整理成文件,而是一次对检测能力、质量体系和长期稳定能力的系统性确认。
对于高通量测序实验室而言,认可体系的核心在于:将国际标准内化为员工工作习惯的能力,并在日复一日的枯燥运行中,始终保持检测能力的在册、受控、不走样。
高通量测序的底层逻辑是极其精密且连续的。为了确保发出的每一组测序数据的真实可靠,谷禾检测实验室严格围绕“公正、科学、守信、高效”的质量管理方针,从人员管理、设备量值、物料方法、环境监控、数据记录五大核心维度,构建了多维一体的立体防线,将标准彻底深化在底层秩序中。
在这套质量方针中,公正始终被放在最前面。对谷禾而言,公正意味着:
“ 在谷禾实验室体系,实验室人员,
从来不是简单完成标准操作的机器,
而是质量体系有血有肉的真正执行者。”
一份样本从接收到报告出具,中间会经过多个岗位。
有人负责核对信息,有人负责样本处理,有人负责核酸提取,有人负责文库构建,有人负责上机测序,有人负责数据分析…每个人手中的动作,可能只是流程中的一小步,但连在一起,就成为一份报告背后看不见的质量支撑。
CNAS 认可要求实验室关注人员能力、培训、监督、授权和持续评价。这些要求最终落到日常,各岗位都要知道:为什么这样做,这样做会影响什么?如果出现偏离,应该如何识别、记录、上报和处理等。
同样重要的,是检测人员在岗位职责内保持独立、客观的技术判断。
样本不会说话,数据也不会主动解释自己。守住每一道关口的,是实验室里那些反复核对编号的人,是每次操作前确认试剂状态的人,是发现异常后停下来追原因的人,是报告发出前逐项检查的人…
将CNAS要求落到谷禾检测的日常里,就是一套动态的人员能力验证模型。
质量管理不是把责任简单压给个人,而是让每个人在清晰的规则、充分的训练和持续的监督中,把事情做对、做稳、做久。
这种能力,不是某一次操作优秀,而是长期稳定;不是把标准挂在墙上,而是让标准融入每一次开盖、每一次移液、每一次复核、每一次签发…
这些看似重复的动作,最终都会落到客户所等待的那份结果里。也正因如此,我们愿意把看似细小的记录留得更清楚,把普通的日常做扎实,让质量体系真正落在每一天的工作里。
宁愿在发现疑点时多停一步,
也不愿把不确定带进样本流程。
高通量测序仪、PCR 仪、荧光定量 PCR 仪、生物安全柜、离心机、微量移液器、纯水仪……许许多多设备构成了一份肠道菌群检测报告背后的技术基础。
然而再精密的仪器,如果状态不可确认,也无法支撑可靠的结果。
一支微量移液器,可能只是实验台上最常见的工具,但它每一次吸取和转移,都关系到微量反应体系的稳定。
一台生物安全柜,不只是设备,更是样本保护、人员保护和污染控制的重要屏障。
设备会通过状态、记录和数据回应实验室的管理水平。因此,在谷禾实验室,设备会贯穿采购、验收、标识、使用、维护、核查、校准、异常处理和记录管理的全过程。
“一份看似普通的粪便样本,
背后都承载着一个人
对了解自身肠道微生态的期待。”
样本是检测的起点,也是客户信任进入实验室的第一站。
从采集、保存、运输,到实验室接收、编号、流转、处理和留存,每一步都需要被认真对待。
对每一份样本保持一致的接收、流转和处置要求,也是公正性在样本端的体现。无论样本来自何种项目、何种合作场景,进入实验室后,都应回到同一套受控流程中被认真对待。
样本要有清晰身份
试剂要有受控状态
耗材要适用于相应实验环节
关键物料要经过必要确认
外部提供的产品和服务也需要被纳入管理
成熟的实验室管理,是要把影响结果的因素尽可能管住。
与样本同等重要的,是各种高精密的试剂与反应耗材。高通量测序对试剂批次间的稳健性要求近乎苛刻。
磁珠吸附力的微量起伏、核酸提取试剂盒的微小原料波动,或者聚合酶的活性晃动,都会在敏感的测序仪中被指数级放大,进而干扰微生物群落的真实丰度。
为此,谷禾对所有生产投入品确立了严格的“状态受控”与“关键物料确认”原则。
“ 能说明的,用严谨的数据讲清楚。
不能过度推断的,我们严格守住边界。
把科学的不确定性放在它该在的位置。”
在菌群检测中,方法贯穿样本处理、核酸提取、扩增建库、测序、数据分析和报告审核等多个环节。每一个环节都可能影响最终结果。因此,方法要落实为“流程被理解、被执行、被记录、被复核、被持续改进”。
谷禾检测对方法的理解,是专业,也是克制。
专业,是因为检测方法必须经过充分确认。在检测项目建立和持续运行过程中,我们会围绕方法适用性、关键性能表现、操作边界和结果稳定性等方面开展系统评估,确保方法能够满足预期用途。
好的方法,不是让实验室显得复杂,而是让复杂工作变得稳定。
对于肠道菌群检测中涉及的分子生物学实验环节,谷禾检测关注的除了能不能检出之外,还有方法在不同样本状态、不同批次运行和不同实验条件下是否依然保持稳定。
哪些步骤必须严格一致,哪些条件不能随意改变,哪些异常信号需要暂停复核等等,都是由方法体系本身来约束。
在微生态检测领域,复杂性不仅来自实验台,也来自数据端。高通量测序产生的是海量数据,形成正式的报告之前,还需要经过数据质控、序列处理、分类注释、结果整合、专业审核等。
每一次涉及分析逻辑、版本状态或关键参数的调整,都需要经过相应评估和确认,确保升级带来的是能力提升,而不是结果波动。
CNAS评审专家们对谷禾检测实验室的实验方案、分析流程及关键参数控制,进行全方位、系统性的现场核查与技术确证。
专业的另一面,是克制,是边界。
报告表达必须基于检测数据本身,不能越过证据范围去制造确定性,也不能为了迎合期待而扩大解释。肠道菌群检测可以帮助客户了解肠道微生态的组成和特征,但它不应被包装成超出检测能力范围的承诺。
一次偶发异常结果背后的多轨复核
一处原始记录细节的补充确认
一项分析流程变更前后的评估
一份报告发出前的层层审查
…
它们隐身于幕后,
却真真切切地决定了
一份报告是否值得被托付信任
“ 好的实验环境,
让正确的事更容易发生,
让错误的事更不易发生。”
在微生物检测和基因扩增相关实验中,环境从来不是背景。环境本身,就是质量的一部分。
肠道菌群检测面对的是复杂微生物群落。样本之间、区域之间、人员操作之间,以及仪器状态、空间条件、输入物料等外部变量,都可能对结果稳定性产生影响。
对高通量测序而言,一些风险并不总是以明显故障的形式出现,它可能是设备运行状态中的细微漂移,也可能是空间流转中的潜在交叉干扰。
在空间管理层面,谷禾检测重视功能区域之间的边界感。
涉及核酸处理、扩增和测序相关的关键区域,需要通过合理分区、标识管理、人员与物料流转控制、清洁消毒和污染防控措施,尽可能降低交叉干扰风险。
该隔离的区域要隔离,该限制的进入要限制,该标识的状态要标识,该记录的条件要记录。环境条件不适合时,检测活动就不能被简单推进;存在潜在风险时,就需要先判断、先控制、先确认。
这些日复一日的环境控制,可以保护样本不被无关因素干扰,保护人员在安全条件下工作,也保护最终结果不被不必要的外部变量影响。
谷禾检测的环境,不仅是一间实验室的装修和空间,而是一种质量氛围:
环境会在每一份稳定的结果里,留下自己的痕迹。
应用十多年的底层技术迭代与平台进化
16S rRNA 扩增子检测,作为谷禾的高频基石技术,是谷禾在微生物组学领域扎根最深、应用场景最广、数据资产最雄厚的底层技术支撑。
在谷禾多年的肠道菌群检测、微生态研究服务和高通量测序的大规模实践中,16S rRNA 测序长期扮演着连接微生态样本与高维度生命科学大数据的关键纽带。
作为谷禾最早推向市场、经历了十余年应用与多轮标准化迭代的经典项目,它完整见证了海量复杂样本的自动化流转、实验反应体系的优化、生物信息学分析算法的迭代升级,数以万计科研与临床报告的交付等。
伴随着这一长周期的技术演进历程,谷禾在微生物组检测领域逐步构建起了严密的方法学验证体系,确立了标准作业程序(SOP)的底层逻辑。
一个高通量测序项目真正的成熟与强大,取决于它能否在大规模、跨批次、长周期的实际运行中,有效对抗各种高风险变量,始终保持极高的多中心稳定性和结果复现性。
纳入全球互认体系的底层逻辑升级
此次,16S rRNA 扩增子检测项目通过 CNAS 认可,是谷禾长期的技术沉淀与质量管理体系深度融合的必然结果,意味着谷禾持续运行的检测,全面正式跨入了全球多边互认的合规轨道。
16S rRNA 扩增子检测项目从企业经典向国际认可的跨越,是检测与质量的全面升级。在 CNAS 质量框架下,16S rRNA 项目的运行实现了多维一体的规范化:
经典,代表它经历过时间和样本的检验
认可,代表它进入了更规范、受控和可评价的质量框架
两者结合,构成了谷禾 16S rRNA 扩增子检测项目今天的底气
深度赋能全产业链伙伴
对于长期携手并进的科研学者、临床专家、生物医药企业以及大健康产业同仁而言,这一升级意味着:谷禾为全产业链合作伙伴的课题研究、队列分析、产品研发、商业化落地、功效评价、微生态应用,提供了坚实的数据底座。
-为科学研究、临床转化与大健康产业筑牢底座-
CNAS 认可是一项阶段性成果,也是一项持续性的要求。
从宏基因组检测项目获得认可,到顺利通过 CNAS 首次监督评审;从 16S rRNA 扩增子检测项目长期规模化运行,到正式纳入 CNAS 认可范围,谷禾走过的,是一条把技术做深、把体系做实、把数据做稳的长期主义之路。
这条路没有捷径。
– 它来自十多年的技术迭代,也来自每一天的样本、记录、复核和改进;
– 它来自实验平台的持续进化,也来自质量体系对每一个细节的长期约束;
– 它来自团队所有人对微生物组检测的专业投入,也来自谷禾对客户信任的持续回应
…
这一次,我们为团队感到骄傲;
同时也更清醒地知道,认可之后,标准只会更高,责任只会更重。
未来,谷禾将继续围绕微生物组检测和高通量测序技术,持续完善检测方法、质量控制、生物信息分析和数据管理流程,在每一次样本处理、每一轮数据分析、每一份报告审核中,保持对标准的敬畏和对结果的审慎。
因为我们深知样本的背后,连接着一个个科研问题、一项项转化探索、一次次产品验证,或者一个人对自身健康状态的认真关注。
样本和数据不会说话,但谷禾的选择,定义了数据的分量。
我们专注检测
坚持检测平台的中立性,不因商业压力或主观判断改变检测结果;
我们尊重数据
坚持科学严谨,不为了迎合期待而扩大解释;
我们重视体系
因为只有把标准融入日常,检测能力才能长期稳定地保持;
我们敬畏样本
坚持职业的同理心,因为每一份样本背后,都是一份真实的托付。
以此为新的起点,谷禾将坚定依托这套获得国家级认可的标准化检测体系,以扎实的技术积累和持续的体系建设,推动微生物组检测服务向更加规范、可靠、可持续的方向发展。
谷禾将用这份穿越周期的确定性,为国内外顶尖科研机构的多中心大队列研究、高分顶级临床文献的发表、精准个性化微生态干预方案的制定,乃至下游创新型产品开发,提供精准、可靠、经得起全球科学界与监管机构反复推敲的高质量底层数据支撑。
把看不见的标准
做进看得见的结果里
谷禾,与前沿科学同频
始终与全产业链伙伴同行
编辑
谷禾健康
编辑
在现代快节奏的生活中,消化系统不适已成为困扰全球数亿人的常见问题。其中,腹胀和便秘是最为普遍的胃肠道症状。它们不仅带来身体上的沉重感、疼痛和不适,更深刻影响着患者的心理健康和生活质量。许多患者在经历了长期的腹胀和排便困难后,最终被诊断为肠易激综合征(Irritable Bowel Syndrome, IBS),这是一种以腹痛伴随排便习惯改变为特征的功能性肠病。
过去,这类问题常被简单归因于“消化不良”或“胃肠动力不足”。随着神经胃肠病学和微生物组学的发展,人们逐渐认识到其背后是复杂的脑-肠-微生物轴失调。
研究表明,腹胀和便秘并非孤立的局部问题,而是涉及中枢神经系统、肠神经系统(ENS)、肠道内分泌激素、免疫炎症反应以及数以万亿计的肠道微生物的系统性失调。
本文将基于最新的科学研究和临床指南(如罗马IV标准),深入探讨腹胀与便秘的定义、高发人群、病理生理机制,特别是肠道菌群和肠道激素在其中扮演的关键角色,并为您提供一套涵盖饮食、微生态调节、生活方式及中医药的综合干预建议。
腹胀是一个常见但复杂的症状,原因多种多样,从饮食和压力到肠道微生物群失衡或医疗状况。本文解释了胃肠科医生通常会如何应对腹胀,胃肠专家会诊时应期待的情况,以及消化健康评估如何识别腹部不适背后的模式。帮助判断何时采取基础干预,何时需要进一步检查。
▸ 什么是腹胀和便秘?
▸ 腹胀的定义
腹胀是腹部胀气或膨胀感的统称。普通人吃饭后偶尔会有轻度腹胀,这是正常生理现象。只有频繁发作或持续存在的腹胀才需要关注。
▸ 便秘的定义
便秘主要表现为排便次数减少、粪便干硬及排便困难。一般以每周排便少于3次,并伴有排便费力或不畅作为诊断标准。
注:每个人排便习惯存在差异,有人每日1–2次,也有人2–3天一次。只要规律且粪便不干硬,均不属于便秘。
下面将从临床与医学角度进一步解析腹胀和便秘的定义及其亚型。
▸ 临床与医学定义
(主观感受与客观体征)
在消化系统临床中,腹胀是最常见且困扰患者的症状之一。医学上需区分“Bloating”和“Distension”两个概念。根据罗马IV标准及国际疾病分类(ICD-11),其区别主要如下:
▸主观腹胀(Bloating):指患者主观感受到的腹部饱胀感、紧绷感或气体堵胀感。这是一种感觉,可能伴随也可能不伴随腹部的实际增大。
▸客观腹部膨隆(Distension):指客观上可测量到的腹围增加,通常是肉眼可见的腹部向外突出。
二者可单独或同时存在。普通人群中,主观腹胀患病率约19%,伴客观腹围增加约9%;而在肠易激综合征(IBS)等功能性肠病患者中可高达66%–90%。
★ 腹胀是多系统的复杂失调
罗马IV标准将功能性腹胀和腹部膨隆定义为独立的“肠-脑互动异常”疾病。其诊断要求为:反复出现腹胀或腹部膨隆,平均每周至少1天,症状在诊断前已持续6个月,且近3个月符合标准,并排除IBS、功能性便秘等其他功能性胃肠病。该区分提示腹胀并非单一器质性问题,而是涉及神经、肌肉、微生物及免疫系统的复杂失调。
▸ 腹胀的亚型
腹胀可以分为功能性腹胀和器质性腹胀:
▸功能性腹胀:最常见,无明显的解剖学或生化异常。其发生多与内脏高敏感性、胃肠动力异常、肠道菌群失调及腹膈肌协同失调有关。
▸器质性腹胀:由明确的疾病引起,如肠梗阻、腹水(肝硬化、心衰引起)、胃轻瘫、乳糜泻、卵巢肿瘤等。在重症医学科中,腹胀甚至可能是危及生命的腹腔间隔室综合征(ACS)的先兆。
相比之下,功能性腹胀缺乏常规临床评估可解释的器质性原因。
▸ 腹胀与腹部肥胖的区别
许多患者,尤其是女性,常将功能性腹胀导致的腹围增大误认为“发胖”或“腹部肥胖”,但两者本质上截然不同:
▸基础原因不同:腹部肥胖是由于皮下脂肪或内脏脂肪的长期过度蓄积;而腹胀引起的腹围增大,多由肠道气体、滞留粪便或腹壁肌张力异常导致腹腔内容物前移所致。
▸时间节律不同:肥胖引起的腹围增大相对稳定,短时间内变化不明显;而功能性腹胀呈明显昼夜节律,常表现为“晨轻暮重”:晨起腹部平坦,随进食逐渐加重,至傍晚或夜间达峰,经休息或排气排便后缓解。
▸伴随症状不同:腹胀常伴有肠鸣音亢进、频繁嗳气、排气增多、腹痛或排便习惯改变(如便秘);而单纯的腹部肥胖通常不伴随这些消化道急性症状。
1
总体患病率与风险因素
腹胀和便秘是全球常见的健康问题。流行病学调查显示,全球约有15%-18%的普通人群每周至少经历一次腹胀。在中国,成人慢性便秘的患病率约为4.0%~10.0%,且随着年龄的增长而显著升高,80岁以上老年人的患病率甚至可达38.0%。
两者常相伴发生。在便秘型肠易激综合征(IBS-C)和功能性便秘(FC)患者中,超过90%伴有明显腹胀。
▸ 共同风险因素
这两种症状的共同风险因素包括:
–不良的饮食习惯(如高脂、低纤维饮食,高肉类摄入);
–缺乏体力活动或运动;
–不规律的排便习惯、
–精神心理压力(焦虑、抑郁、睡眠质量差);
–年龄、疾病因素等。
编辑
2
女性更易患腹胀和便秘
需要注意的是,腹胀和便秘的性别差异极为显著,女性患病率通常为男性的1.5~2倍以上。
女性之所以成为腹胀和便秘的高发群体,性激素(雌激素和孕激素)的周期性波动和生命阶段性衰退起到了决定性作用。特别是在围绝经期和围产期,女性的胃肠道面临着巨大的生理挑战。
▸ 围绝经期女性的“肠道危机”
围绝经期是指女性绝经前后的一段过渡时期,其核心特征是卵巢功能衰退,雌激素和孕激素水平剧烈波动并最终显著下降。研究表明,绝经后女性患便秘和IBS的症状严重程度显著高于绝经前女性。其机制主要包括:
1.胃肠动力减弱:雌激素受体(ERα、ERβ)及G蛋白偶联受体(GPER/GPR30)广泛存在于肠神经系统和肌间神经丛。雌激素通过一氧化氮(NO)通路调节平滑肌收缩与舒张;其水平下降会减慢胃肠蠕动、延迟胃排空并延长结肠传输时间,从而引发便秘和腹胀。
2.肠道微生态失衡:肠道菌群与雌激素相互调节。肠内“雌激素代谢菌群”通过分泌β-葡萄糖醛酸酶,将结合态雌激素转为游离态,促进肠肝循环重吸收。围绝经期雌激素下降会降低菌群多样性,减少有益菌、增加有害菌,既降低雌激素利用率,又增强发酵产气,加重腹胀。
3.内脏敏感性增加:雌激素对中枢神经系统的痛觉调节具有保护作用;其缺乏会降低内脏痛觉阈值,使正常肠气或轻度扩张被放大为明显的腹胀和腹痛。
▸ 围产期女性的“双重压迫”
在怀孕期间及产后(围产期),女性同样极易发生便秘和腹胀,患病率可高达40%-52%。其原因包括:
1.激素风暴:孕期孕激素显著升高,其平滑肌松弛作用虽可防止子宫过早收缩,但也降低胃肠道平滑肌张力、减弱肠蠕动,使食物残渣滞留时间延长、水分过度吸收,从而导致粪便干结和气体滞留。
2.机械性压迫:随着胎儿的生长,不断增大的子宫会直接压迫直肠和乙状结肠,形成物理性梗阻,阻碍粪便和气体的排出。
3.产后盆底肌受损:分娩(尤其阴道分娩)可损伤盆底肌及阴部神经,导致排便协同失调,排便时盆底肌反而收缩,进而引起排便困难和继发性腹胀。
1
饮食不当(最常见)
饮食不当是腹胀的首要原因,占比超过60%。具体常见情况主要有以下几种:
▸ 吃太多容易产气的食物
豆类、洋葱、大蒜、韭菜、萝卜、卷心菜、甘蓝这些食物含有较多不易消化的碳水化合物。它们进入结肠后被细菌发酵产生大量气体,易引发腹胀。
许多人饮奶后腹胀,多为乳糖不耐受所致,中国人约70%存在不同程度乳糖不耐受。
▸ 吃饭太快
吃饭速度快会吞入大量空气。这些空气进入胃肠道,加重腹胀感。边吃边说话更容易吞入空气。
▸ 吃太多高脂高糖食物
高脂肪高糖食物减慢胃排空速度,食物在胃内停留时间延长,发酵产气增加。
可能导致腹胀发生的因素
编辑
2
功能性消化不良
功能性消化不良占腹胀原因的15%~20%。这种病无明显胃肠结构异常,主要表现为餐后饱胀、早饱和上腹胀痛。
其发病与胃动力异常及内脏高敏感有关,约半数患者合并幽门螺杆菌感染,根除后部分症状可缓解。
3
本身便秘
便秘患者粪便长时间积聚在结肠内,细菌发酵粪便产生大量气体。便秘本身就会引发严重腹胀。很多便秘患者第一主诉就是腹胀。
4
肠易激综合征
肠易激综合征是一种常见功能性肠病。腹胀是肠易激综合征便秘型最常见症状,大约80%患者有不同程度腹胀。腹胀症状在排便后通常会减轻。
肠易激综合征中的微生物群改变
编辑
Almonajjed MB,et al.Medicina (Kaunas).2025
5
肠道菌群失调
抗生素使用、饮食改变和年龄增长可改变肠道菌群组成;产气菌过度生长会增加气体生成,导致持续腹胀。
▸ 肠道菌群失调会加重腹胀和消化功能障碍
肠道菌群失调还意味着微生物群落失衡。当产气细菌数量超过其他细菌,或有益菌数量被耗尽时,发酵平衡会倾斜。
肠道微生物群的失调会导致中枢和消化生理过程的改变,包括运动性和免疫功能,这些都会加重腹胀和消化功能障碍。
▸ 腹胀可能与菌群失调相关的迹象:
6
胃酸过低(低盐酸)
这里小编要特别强调,胃酸不足是传统医学中常被忽视的根本原因之一。胃酸(HCl)对蛋白质分解、食物杀菌、启动消化级联反应及维持酶活性所需酸性环境至关重要;其不足时,食物尤其蛋白质在进入小肠前难以充分消化。
▸ 低胃酸可致小肠细菌过度生长,从而引起腹胀
文献综述显示,胃酸不足时未消化食物在胃肠道发酵,可能诱发小肠细菌过度生长(SIBO),并促进幽门螺杆菌等进一步增殖。
SIBO与腹胀、吸收不良和腹泻有关,直接与胃酸减少及随后的上小肠菌群失衡相关。关于低盐碱和细菌过度生长的研究发现,在低酸条件下,小肠中的细菌过度生长会导致本应用于重要代谢功能的蛋白质分解,从而产生消化和系统下游的影响。
▸ 腹胀可能与胃酸过低有关的迹象:
7
肠道蠕动缓慢
肠道内存在“清洁运转周期”,对腹胀的发生至关重要。该专业名词为迁移运动复合体(MMC):MMC 是空腹期周期性反复出现的肠蠕动模式,可在餐间“清扫”残留食物残渣、细菌和其他残留物。
缺乏正常 MMC 活性与胃轻瘫、肠道假性阻塞及小肠细菌过度生长有关,从而引起显著腹胀。研究显示,慢传输型便秘患者常出现 MMC 异常(如缺失或延长周期,以及关键阶段蠕动减退)。MMC 受损时,食物停滞并发酵,平时会被清除的菌群得以定植和繁殖,进而导致腹胀、便秘和 SIBO。
▸ 腹胀可能与肠道蠕动缓慢有关的迹象:
8
小肠细菌过度生长(SIBO)
小肠细菌会分解碳水并生成气体及短链脂肪酸;当细菌过多并“吞食”时,气体与其他副产物就会显著增多。它们还会消耗蛋白质和维生素B12,以及脂肪消化所需的胆汁盐。
因此,小肠细菌过度生长(SIBO)导致的腹胀往往特别令人困惑:常见的“健康食物”反而会诱发发作。益生元纤维、洋葱、大蒜、苹果、豆类和发酵食品会为细菌提供养分;若这些细菌在小肠而非结肠内大量繁殖,就会在不合适的时间、地点与剂量下发生发酵,从而引起症状。
SIBO 往往并非独立疾病,而是多因素共同导致:胃酸受损使细菌得以在小肠存活,MMC 功能障碍无法有效清除,并叠加结构性问题形成“藏匿口袋”。
▸ 腹胀可能与 SIBO 相关的迹象:
9
消化酶不足
消化酶是分解食物的关键:淀粉酶处理碳水,蛋白酶处理蛋白质,脂肪酶负责脂肪。若酶分泌不足,食物会以较大且未充分消化的形式进入肠道,随后被细菌分解,从而引发腹胀。
▸ 最常见的是外分泌胰酶缺乏,导致脂肪吸收差
临床上最公认的情况是外分泌胰功能不全(EPI)。EPI的核心特征是外分泌胰酶缺乏,而脂肪吸收不良是最典型表现,常伴腹部不适和腹胀。
不过,腹胀不一定要达到“明显缺乏酶”的程度。亚临床功能不足(常与胃酸过低有关,因胃酸参与触发酶释放的信号级联反应)、压力或衰老,也可能导致碳水与脂肪分解不良。
▸ 腹胀可能与消化酶不足相关的迹象:
10
慢性压力与神经系统失调
这一点常被低估:若你曾在恐惧或压力时感到“胃部下沉”,甚至出现消化仿佛完全停止的体验,你可能已亲身感受到肠-脑轴。
▸ 压力或心情不好会影响食物消化
研究表明,压力会抑制迷走神经,进而损害胃肠道及微生物群,并参与肠易激综合征、炎症性肠病等胃肠疾病的发生发展。
肠易激综合征病理生理学要素
编辑
doi: 10.3390/jcm12072558.
迷走神经是肠道与大脑之间的重要通路。处于交感神经优势时,消化会被“忽略”:胃酸减少、酶分泌下降、肠蠕动减缓,且 MMC 节律受影响。清单中的这些环节都可能因长期且未缓解的压力而加重。
此外,迷走神经对肠道功能具有关键的中枢调控作用;压力可通过该通路直接影响消化动力、分泌与免疫功能。
▸ 腹胀可能与压力相关的迹象:
11
激素波动
这一原因仅限于女性,在功能和传统环境中都被严重低估。
▸ 月经周期可能会影响女性消化和吸收
一项关于孕酮与胃肠蠕动的综述指出:孕酮会减慢胃肠蠕动,并以“剂量依赖”方式影响胃排空,从而促成许多女性在黄体期出现消化迟缓和腹胀。
在月经周期中,卵巢激素的波动会调节胃肠道的收缩力、运输、分泌、内脏敏感性和免疫功能;月经期间雌激素水平下降可能尤其增加腹痛、改变排便习惯并引发腹胀。
此外,研究显示肠道通透性与月经周期存在关联:黄体期孕酮相关的变化可能影响肠道通透性、细菌易位以及乳房肿胀、腹胀等生理症状的严重程度。
▸ 临床实际情况:
▸ 腹胀可能与激素有关的迹象:
12
胃肠道器质性疾病
▸ 慢性胃炎、胃下垂
慢性胃炎患者胃动力减弱,食物排空减慢,容易腹胀。
胃下垂患者胃排空能力明显下降,站立后腹胀加重。
▸ 幽门梗阻
幽门是胃通向十二指肠的出口。溃疡或肿瘤造成幽门梗阻,食物和气体无法顺利通过,会引发上腹部严重腹胀。
▸ 肠梗阻
肿瘤、粪块、粘连性肠梗阻都能阻挡肠道内容物通过。梗阻近端肠道积气积液,腹胀非常明显,同时伴随停止排气排便。
▸ 腹腔肿瘤
卵巢癌、结肠癌、胃癌增长到一定体积,占据腹腔空间,产生持续腹胀。
13
全身性疾病
▸ 糖尿病
糖尿病患者常合并胃肠自主神经病变,胃排空减慢,肠蠕动减慢,引发腹胀便秘。
▸ 甲状腺功能减退
甲状腺激素分泌不足,全身代谢减慢,胃肠道蠕动也减慢,容易腹胀便秘。
▸ 慢性肾功能不全
尿毒症毒素影响胃肠道平滑肌功能,引发腹胀食欲下降。
▸ 心力衰竭
右心衰竭患者腹腔脏器淤血,胃肠道水肿,蠕动减慢,易出现腹胀食欲减退。
1
饮食结构不合理(最常见)
当代饮食越来越精细,膳食纤维普遍摄入不足。纤维能增加粪便体积、促进肠道蠕动;纤维不足则粪便量小、对肠道刺激不够,因而更容易便秘。
中国居民膳食纤维推荐摄入量是每天25~30克。实际调查显示,国人平均摄入量只有10~15克,远达不到推荐标准。
▸ 具体饮食相关因素:
– 吃太多精加工米面,全谷物摄入太少;
– 蔬菜水果吃得不够;
– 喝水太少,粪便水分被过度吸收,变得干硬;
– 吃太多肉类,膳食纤维严重不足。
可能导致便秘发生的因素
编辑
2
不良生活习惯
▸ 缺乏运动
长期久坐不动,肠道蠕动减慢。很多办公室工作者每天坐着超过8小时,便秘发生率明显高于体力劳动者。
▸ 排便习惯不良
很多人因为工作紧张,有便意时憋着不排便。长期反复这样,直肠对粪便刺激敏感性降低,便意减退,引发便秘。
▸ 如厕习惯不好
许多人上厕所玩手机,排便时间延长,容易诱发盆底肌功能紊乱,加重便秘。
▸ 长期精神紧张压力大
压力会通过脑肠轴影响肠道蠕动,进而影响便秘。
3
年龄增长
随着年龄增长,胃肠道蠕动减弱,腹肌与盆底肌力量下降,排便动力随之减弱,因此老年人便秘的发生率明显高于年轻人。60岁以上老年人的便秘发生率约为年轻人的2–3倍。
4
药物副作用
很多常用药物会引起便秘,这是临床便秘重要原因之一。
▸ 常见引起便秘的药物:
5
肠道菌群紊乱
越来越多研究证实,肠道菌群失调在便秘发病中起到重要作用。具体哪些细菌和便秘有关,我们后面专门详细说。
肠道微生物群可能影响便秘的发病机制
编辑
doi: 10.1093/gastro/goab035.
6
功能性疾病
▸ 肠易激综合征便秘型
肠易激综合征便秘型,除了便秘还伴随腹痛腹胀,排便后腹痛腹胀减轻。
▸ 结直肠肿瘤
肿瘤长大堵塞肠腔,造成排便困难。老年人突然发生便秘,一定要首先排除肿瘤可能。
▸ 直肠前突/盆底肌功能障碍
这是女性出口梗阻型便秘常见原因,多次生育女性更容易发生。
▸ 糖尿病
糖尿病神经病变影响肠道蠕动,很多糖尿病患者合并便秘。
▸ 甲状腺功能减退
甲状腺激素不足,全身代谢减慢,肠道蠕动也减慢。
▸ 神经系统疾病
中风、帕金森病、多发性硬化都能影响神经控制,引发便秘。
1
内脏高敏与腹膈肌协同失调
功能性腹胀的发生机制极其复杂,目前认为主要由以下几个核心环节构成:
▸ 内脏高敏感性
首先是内脏高敏感性。这是肠易激综合征(IBS) 和功能性腹胀的关键机制:患者的肠道会对正常生理刺激(如少量气体、食物残渣或正常蠕动)产生过度敏感。
其原因可能包括肠道黏膜的低度炎症、肠道通透性增加(“肠漏”),使潜在有害物质刺激黏膜下神经丛;信号经脊髓传入大脑后,被大脑皮层(如前扣带回、岛叶)错误地放大解读为胀痛感。
▸ 腹膈肌协同失调
其次是腹膈肌协同失调,它解释了为什么腹胀患者的腹围会明显增大。
健康情况下,肠道内容物增多(气体或食物)会触发协调反射:膈肌向上松弛、腹壁肌肉收缩,从而增加腹腔容积,避免腹部向前突出。
但在腹胀患者中,该反射出现异常:进食或肠腔轻度扩张时,膈肌反而出现矛盾性收缩(向下移动),同时前腹壁肌肉异常松弛。这种内脏-躯体反射失调会使腹腔内容物被向下、向前挤压,从而造成可见的腹部膨隆。
2
腹胀与便秘同行的疾病机理与致病因素
腹胀与便秘常常是“难兄难弟”,两者同发的概率很高。在慢传输型便秘和便秘型肠易激综合征(IBS-C)中,二者病理机制相互促进,形成恶性循环。
▸ 粪便滞留与过度发酵
当结肠蠕动减弱(慢传输)或排便出口受阻(排便障碍)时,粪便在肠内停留时间变长。水分被过度吸收使粪便干硬;更关键的是,滞留的食物残渣为肠道菌群提供底物,促使细菌长时间发酵,产生大量气体(如氢气、甲烷、二氧化碳)。
▸ 肠腔扩张与动力抑制
气体增多与粪便堆积会造成肠腔扩张。一方面直接引起腹部胀满;另一方面可触发抑制性反射,进一步减弱肠蠕动,加重便秘。
此外,部分气体(如甲烷)还可能具有神经肌肉毒性,直接抑制肠道平滑肌收缩,减慢肠道传输。
3
肠道激素与神经递质在胃肠动力中的作用
胃肠道不仅负责消化,也被认为是人体最大的内分泌器官。肠道激素与神经递质共同调控胃肠动力、感觉和分泌,起到“指挥官”的作用。
肠道微生物群对神经递质的调节
编辑
•血清素(5-羟色胺):人体约95%的血清素(5-HT)存在于胃肠道,主要由肠嗜铬细胞(EC细胞)合成并释放。5-HT是“脑-肠轴”连接的重要关键分子:当食物或气体刺激肠壁时,EC细胞释放5-HT,作用于肠神经系统的5-HT3与5-HT4受体。
5-HT4受体激活可促进乙酰胆碱释放,增强肠蠕动与分泌;5-HT3受体则参与疼痛信号向中枢传递。便秘患者常见5-HT通路异常(如合成减少、受体表达下调),导致肠道动力不足;而IBS患者则多见异常释放,引发内脏高敏与腹痛。
•胃动素:由小肠M细胞分泌,主要在空腹(消化间期)释放;它激活MMC的第III相,也就是“肠道清道夫”运动,将未消化的食物残渣和细菌推向大肠。若胃动素分泌不足或受体不敏感,便会导致胃排空延迟和小肠细菌过度生长(SIBO),进而引起腹胀。
•胆囊收缩素:主要由小肠I细胞分泌。进食脂肪和蛋白质后,CCK释放增多,促进胆囊收缩并刺激胰酶分泌;同时它显著抑制胃排空、减慢结肠传输。IBS患者可能对CCK更敏感,从而出现进食后夸张的动力抑制与腹胀。
•多巴胺:尽管多巴胺常被视为中枢“快乐递质”,但肠道同样可合成大量多巴胺。肠道多巴胺受体(如D2受体)被激活时,通常会抑制胃肠动力。因此,帕金森病患者往往伴随顽固便秘和腹胀(中枢多巴胺不足,同时外周受体敏感性可能发生改变)。
4
肠道产气机制及其对症状的放大效应
正常成年人每天肠道排气量约为500-1500毫升。肠道气体主要来源于吞咽的空气和肠道细菌的发酵。未被小肠完全吸收的碳水化合物(如膳食纤维、低聚糖、抗性淀粉)进入结肠后,被肠道菌群发酵,产生氢气(H2)、二氧化碳(CO2)以及微量的甲烷(CH4)和硫化氢(H2S)。
编辑
不同菌群代谢产生的气体对肠道功能影响迥异。例如,甲烷(CH4)不仅是一种温室气体,在人体内它被证明是一种神经递质调节剂。
产甲烷菌(如史氏甲烷短杆菌Methanobrevibacter smithii)消耗氢气生成甲烷。高浓度的甲烷能够直接抑制回肠和结肠的平滑肌收缩,显著延长肠道传输时间。临床研究证实,呼气试验中甲烷阳性的患者,其便秘的严重程度和腹胀频率远高于阴性患者。此外,硫化氢(H2S)虽然量少,但具有高度毒性,不仅产生恶臭,还可能损害肠道上皮细胞的能量代谢,加剧内脏高敏。
近年来研究已证实:肠道菌群在便秘与腹胀的发生发展中起关键作用。
便秘患者粪便菌群α多样性通常降低,厚壁菌门/拟杆菌门比例升高。
1
产气菌过度生长易导致腹胀
产气菌过度生长会使肠道内产生的气体增多,从而引发腹胀等不适症状。
–Klebsiella pneumoniae(肺炎克雷伯菌)
克雷伯菌过度生长会产生大量气体,引发明显腹胀。很多小肠细菌过度生长患者,克雷伯菌丰度显著升高。
–Streptococcus属某些物种
链球菌发酵碳水化合物产生大量气体,增加腹胀风险。
-Enterobacteriaceae科整体
肠杆菌科多数细菌发酵碳水化合物产气,丰度升高后气体产生增加。
人类肠道微生物组中主要的产气微生物
编辑
doi.org/10.1016/j.jff.2022.105367
2
为什么产气菌多会腹胀便秘?
产气菌过度增殖会消耗可发酵碳水化合物,生成大量氢气、二氧化碳和甲烷;气体积聚引起腹胀。与此同时,甲烷可减慢肠蠕动、延长结肠传输时间,从而加重便秘,因此不少便秘患者常同时出现腹胀。
细菌发酵中H2、H2S、CH4和CO2的生化途径
编辑
doi.org/10.1016/j.jff.2022.105367
3
哪些细菌增多易导致腹胀?
–Desulfovibrio物种
硫酸盐还原菌代谢产生硫化氢,高浓度硫化氢对肠道平滑肌有毒性作用,抑制蠕动。研究发现,便秘患者硫酸盐还原菌丰度高于健康人。
-黏液降解菌过度生长
Akkermansia muciniphila(嗜黏蛋白阿克曼菌)专门降解肠道黏液层。适量阿克曼菌对健康有益,过度生长会破坏黏液屏障,引发肠道炎症,影响蠕动功能。
微生物群和肠道屏障完整性
编辑
4
哪些细菌减少易导致便秘腹胀?
-产丁酸菌减少
丁酸盐是结肠上皮细胞主要能量来源,同时能够促进肠道蠕动,维持肠道正常节律。
主要产丁酸细菌包括:Faecalibacterium prausnitzii(普拉梭菌)、Roseburia属物种(如Roseburia inulinivorans)、Eubacterium rectale(直肠真杆菌)、Butyricicoccus pullicaecorum。
这些细菌丰度降低,丁酸产生减少,结肠上皮能量不足,蠕动功能减弱,容易便秘。
–Bifidobacterium(双歧杆菌)减少
双歧杆菌能够调节肠道蠕动,降低肠道pH值,促进有益菌生长。很多研究证实,便秘患者双歧杆菌丰度显著低于健康人。
–Lactobacillus(乳杆菌)某些物种减少
Lactobacillus reuteri(罗伊氏乳杆菌)能够改善肠道动力,减少炎症反应。补充罗伊氏乳杆菌能够缩短结肠传输时间。干酪乳杆菌也能调节肠道运动功能,增加排便频率。
近年来多个大型队列研究证实了肠道菌群和便秘腹胀的关系。随机双盲安慰剂对照试验证实:
补充 Bifidobacterium lactis能够增加每周排便频率,改善粪便性状;
补充Lactobacillus reuteri 缩短结肠传输时间15-20%;
益生元菊粉能够增加粪便中双歧杆菌数量,增加排便频率。
212种肠道微生物群与便秘的因果关联
编辑
doi: 10.3389/fmicb.2024.1438778.
5
针对特定细菌的干预方法
根据肠道菌群检测结果,不同菌群异常采用不同干预策略。
▸ 产气菌过度生长(克雷伯菌、肠杆菌科丰度升高)
饮食干预—减少精制碳水化合物摄入:产气菌喜欢利用容易发酵的简单糖产生气体。减少精制糖就是减少底物。
增加膳食纤维,特别是不可发酵纤维:不可发酵纤维能够促进肠蠕动,减少细菌过度生长。不可发酵纤维主要存在于全谷物外壳、蔬菜的纤维素部分。
低FODMAP饮食:低FODMAP饮食减少可发酵寡糖和单糖,减少气体产生。对小肠细菌过度生长引发的腹胀效果很好。
需要注意,低FODMAP饮食不建议长期使用,一般使用4-6周,症状缓解后需要逐步恢复高纤维饮食,避免长期低纤维饮食对菌群造成不良影响。
益生菌:补充产丁酸益生菌可通过竞争占位抑制产气菌生长;如布拉氏酵母菌、嗜酸乳杆菌等还能减少有害菌过度繁殖,改善肠道菌群环境。
抗生素:确诊为小肠细菌过度生长后,可在医生指导下短期使用抗生素(如利福昔明),通常疗程约1–2周;不建议自行用药,也不推荐长期使用抗生素。
▸ 产丁酸菌减少
增加膳食纤维摄入:尤其是菊粉、低聚果糖等益生元,可选择性促进产丁酸菌生长。常见富含益生元的食物包括:菊苣、芦笋、洋葱、大蒜、香蕉、燕麦。
多吃全谷物:全谷物因膳食纤维更丰富,可促进产丁酸菌生长;抗性淀粉同样能促进其增殖,例如冷却后的米饭和青香蕉都富含抗性淀粉。
直接补充:可以补充含有产丁酸菌的益生菌产品;或者补充丁酸栓剂或丁酸衍生物,但是注意直肠局部生产的丁酸效果更好。
▸ 双歧杆菌、乳杆菌减少
多吃含有低聚糖的食物:比如大豆、洋葱,能够促进双歧杆菌生长。
发酵乳制品:比如酸奶,含有活的乳酸菌,能够直接补充,注意选择无糖原味酸奶,避免额外添加过多糖分
直接补充:直接口服含有双歧杆菌或乳杆菌的益生菌制剂;选择明确标注菌株的产品,不同菌株功能不同。比如罗伊氏乳杆菌DSM17938明确研究证实对便秘有效,购买时可以关注菌株编号。
▸ Parabacteroides distasonis 低丰度
目前没有专门针对性食物。研究发现,蘑菇多糖能够促进P. distasonis 生长。克罗恩病患者食用蘑菇提取物后,P. distasonis 丰度升高,症状改善。可以尝试增加蘑菇摄入,每天吃100-200克新鲜蘑菇,有助于促进生长。
胃肠科医生在评估腹胀时通常会先进行细致而全面的检查:明确症状特点,识别风险,找出最可能引发不适的机制。尽管不同医生的具体方案会有所不同,但常见流程可能包括:
⑴ 询问临床病史
起效时间、发作频率及具体时段(如饭后、早晚),并评估可能诱因。需记录饮食习惯、纤维摄入、碳酸饮料,以及乳糖或果糖的暴露情况,和近期抗生素使用史。
抗生素使用可能产生的关联
编辑
同时梳理排便习惯(便秘、腹泻、腹痛急迫、排便不尽)及伴随症状(烧心、恶心、打嗝、疼痛),是否受月经周期影响,体重变化、疲劳与压力。
药物和补充剂使用情况(如二甲双胍、阿卡博糖、GLP-1 受体激动剂、阿片类药物、制酸剂、益生菌)。
⑵ 体格检查
进行腹部体检,观察是否存在压痛、腹胀、肠鸣音异常,以及器官肥大或肿块;同时评估是否有液体积聚(腹水)或疝气迹象。有时还会进行直肠检查,以了解粪便负担、张力及盆底相关问题。
⑶ 腹部不适的诊断与风险评估
症状出现的年龄、家族史(乳糜泻、炎症性肠病、结直肠癌)、旅行史,以及近期感染或手术史(如胆囊切除术后可能出现胆汁酸相关腹泻)。
⑷ 初步测试(如有指示)
基础化验常包括:全血细胞计数、电解质检测、炎症标志物(如C反应蛋白)、肠道菌群检测、甲状腺功能及乳糜泻相关血清学。
必要时可做粪便检测,如粪便钙卫蛋白用于评估炎症,或粪便病原检测以排除感染。呼气测试可评估乳糖不耐受或果糖吸收不良;而针对小肠细菌过度生长(SIBO),有时会采用乳果糖或葡萄糖呼气测试。
⑸ 询问临床病史
若出现警报症状或检查结果需要进一步评估,可能会进行上消化道内镜(EGD)、结肠镜、腹部超声或其他影像学检查,以排查结构性或炎症性疾病;怀疑胃轻瘫时,可考虑做胃排空检查。
通过整合这些数据点,胃肠科医生会制定计划,可能包括饮食调整、肠道习惯优化、微生物调节策略或治疗特定疾病的方案。重要的是,这很少是一个放之四海而皆准的流程。相反,它是迭代的,并由你个人的反应随时间引导。
!
重点:为什么这个诊疗对肠道健康很重要
腹胀不仅仅是烦恼,它常提示消化系统失衡。对部分人而言,可能是快速发酵的碳水化合物刺激了敏感肠道;对另一些人,缓慢排便与便秘会导致气体积聚;还有人则可能与微生物失衡或炎症有关。
由于肠道与免疫、新陈代谢、神经系统和微生物群紧密相连,理解腹胀有助于打开更广泛的消化健康视角。
积极处理持续腹胀可缓解不适,提升生活质量、精力与社交功能,也能避免反复试验带来的“走弯路”,减少误诊或延误评估的风险,防止症状在无意中加重。
若腹胀伴随非自愿体重减轻、便血、持续呕吐、吞咽困难、发热、贫血,或50岁后新出现的症状等警示信号,应尽早重视并进行及时、详细的评估。
▸ 腹胀并非单独出现,常见伴随症状包括:
长期且失控的腹胀会显著降低生活质量,并因饮食受限导致营养不良,进一步加剧肠—脑反馈循环。腹胀本身虽只是症状而非疾病,但可能提示肠易激综合征、功能性腹胀/膨胀、小肠细菌过度生长(SIBO)、乳糜泻、碳水化合物不耐受、胆汁酸吸收不良,或在特定情况下提示更严重的潜在病理。因此,当症状持续时,进行结构化评估并咨询胃肠专科尤为重要。
1
个体对腹胀原因的差异与不确定性
▸ 症状相似但可能由个性化的不同机制引起
每个人的消化系统都不完全相同。遗传、早期暴露、饮食、压力、激素、药物以及微生物群都会影响肠道对日常食物的反应:同样一顿饭,有人舒服,有人却胀气。
即使症状看起来相似,也可能由不同机制引起。例如,夜间腹胀的两个人可能都表现出相近外观:其中一人可能结肠排出缓慢、以产甲烷的菌群为主;另一人则可能主要由压力和快速发酵的碳水化合物导致内脏过敏。
2
仅根据症状本身难以确定根本原因
▸ 症状相似但可能由于不同病因
腹部腹胀表面上可能很相似:无论成因是气体过度产生、气体处理能力受损、肌肉协调障碍、炎症、酶缺乏还是微生物群失衡,都会出现类似表现。
肠易激综合征、功能性消化不良、乳糖不耐受和小肠细菌过度生长(SIBO)等多种疾病中也常有重叠症状。缺少具体背景时,同样的症状可能对应不同病因,甚至导致误诊。
案例一:许多人误以为所有腹胀都源于豆类和十字花科蔬菜,因此完全回避。但真正的主要诱因往往是严重便秘。相较于减少健康食物,改善排便频率与规律更能缓解腹胀。
案例二:有人会把腹胀归咎于麸质。检测已排除乳糜泻;反而,果聚糖和多元醇可能是个体的主要触发因素。通过结构化的重新引入,可更清楚界定耐受水平,从而保留更多饮食多样性。
案例三:有人在使用抗生素后反复腹胀与腹泻,怀疑乳糖不耐受;但呼气测试及症状出现时间提示,更可能是感染后IBS,且可能伴随SIBO。治疗重点应放在促进胃肠动力与调整微生物平衡。
这些例子说明了清晰诊断框架的价值。它减少了不必要的限制,将精力集中在最重要的地方,并为个性化策略打开了大门——尤其是在结合测试和细致跟进的客观见解时。
鉴于腹胀与便秘发病机制复杂,单一治疗常难以见效。现代医学通常建议采用多层次、多靶点的综合干预,包括饮食调整、微生态治疗、生活方式干预以及中西医结合治疗。
1
饮食干预:低FODMAP饮食与膳食纤维的精准应用
▸ 低FODMAP饮食法是针对腹胀的有效干预
对伴有明显腹胀的 IBS 患者而言,低 FODMAP 饮食是目前国际公认的一线干预方案。FODMAP 指“可发酵的寡糖、二糖、单糖和多元醇”。这类短链碳水在小肠中难以充分吸收,进入结肠后易被细菌快速发酵产气,同时具高渗透性,把水分吸入肠腔,从而引起腹胀并加重腹泻。
低FODMAP饮食分为三个阶段:
1.排除期(2-6周):严格去除所有高FODMAP食物(如小麦、洋葱、大蒜、苹果、西瓜、牛奶、豆类及人工甜味剂),以迅速缓解症状并建立消化基线。
2.重新引入期(6-8周):症状控制后,对各类FODMAP食物进行逐一、少量重引,评估耐受情况,明确具体“触发食物”。
3.个性化维持期:依据测试结果制定长期饮食方案,仅避免已证实不耐受的食物,以兼顾营养均衡与肠道菌群多样性。
▸ 膳食纤维的精准补充
膳食纤维是预防和治疗便秘的关键,但若患者同时伴有腹胀,补充需格外谨慎。不可溶性纤维(如麦麸)虽能增加粪便体积,却可能带来较强摩擦且发酵快,容易加重腹胀;因此更推荐可溶性、非黏性或低发酵性纤维。
例如,猕猴桃(每天2个)已在多项临床试验中证实可显著提高排便频率、软化粪便,并因其特异性酶(如猕猴桃碱)和低发酵特性,通常不易引起腹胀,患者满意度高。
西梅(每天100g)富含山梨糖醇和多酚,具有天然的渗透性通便作用;此外,部分水解瓜尔豆胶(PHGG)和洋车前子壳粉也属优选纤维补充剂,可形成凝胶润滑肠道,产气量较低。
2
微生态调节:益生菌与益生元的循证应用
纠正肠道微生态失衡是治本之策。微生态制剂(益生菌、益生元、合生元)通过竞争性抑制有害菌、修复肠黏膜屏障、调节免疫和神经递质分泌,有效改善腹胀和便秘。
▸ 精准益生菌株的选择
益生菌的效果具有显著的菌株特异性。对IBS相关腹胀与腹痛,长双歧杆菌35624®(Bifidobacterium longum 35624)和格氏乳杆菌LA806循证证实可显著降低IBS严重程度评分(IBS-SSS),缓解内脏高敏。
而对慢性便秘,乳双歧杆菌HN019和动物双歧杆菌BB-12可缩短肠道传输时间并提高排便频率。
▸ 益生元协同作用
益生元(如低聚果糖、菊粉)是益生菌的“食物”。对便秘患者而言,合生元(益生菌+益生元)的联合使用常可产生“1+1>2”的效果。需注意的是,部分益生元含FODMAP,摄入过量可能在早期加重腹胀,应从小剂量开始,逐步增加。
3
生活方式与心理行为干预
生活方式的调整与良好的精神状态,不仅是治疗方案的起点,也是所有治疗能够有效开展的基础。
▸ 日常保持一定的运动
避免久坐:每坐1小时起身活动2-3分钟,走动并做轻度伸展即可促进肠蠕动。
规律运动有助于改善便秘。每周约150分钟的中等强度有氧运动(如快走、慢跑)可机械性刺激胃肠蠕动、缩短结肠传输时间。太极拳与瑜伽等特定运动(如膝胸动作)配合腹式呼吸与腹部内脏按摩,既能促进排气,也有助于调节自主神经、降低交感兴奋,缓解压力。
推荐运动项目:
-快走或慢跑:每天30分钟,促进全身血液循环,增加肠蠕动;
-瑜伽:很多扭转体式能够按摩腹部肠道,促进蠕动;
-游泳:全身运动,促进代谢,改善肠道功能;
-腹肌锻炼:适当锻炼腹肌,增加排便动力,老年人特别需要注意腹肌锻炼。
▸ 压力管理
长期压力增大,通过脑肠轴抑制肠道蠕动。你可以尝试:
-每天10-15分钟深呼吸冥想;
– 规律作息,保证每天7-8小时睡眠;
– 找到适合自己的放松方式,比如听音乐、养花、散步。
▸ 环境调整
-旅行环境改变容易便秘,提前做好准备,带够膳食纤维食物,不要完全改变饮食习惯。
–长期精神紧张工作环境,试着拆分任务减少压力,定时起来活动。
▸ 心里干预
鉴于“脑-肠轴”的紧密关联,心理干预对难治性腹胀和便秘尤为关键。认知行为疗法(CBT)、肠道导向催眠疗法和正念冥想可降低焦虑与抑郁水平,纠正大脑对内脏痛觉信号的异常处理,从而从根本上缓解症状。
4
中医药干预:中草药、针灸与内外同治
中医药在治疗功能性胃肠病方面具有独特的“整体观念”和“辨证论治”优势,强调多靶点、双向调节。
▸ 中草药的独特机制
大黄:大黄是治疗便秘的中医经典药。现代研究认为其具有“双向调节”机制:蒽醌类成分(如番泻苷)在肠道菌群作用下转化为大黄酸,可刺激肠神经丛,促进肠液分泌与蠕动,从而通便泻下;而其中的鞣质类成分具收敛作用,可抑制肠道水通道蛋白(AQPs)表达,起到止泻作用。凭借这种动态平衡,大黄在腹泻-便秘交替型IBS的治疗中更具优势。
生姜与薄荷油:生姜含姜辣素和姜烯酚,具有促胃动力、抗炎与抗氧化作用,可加速胃排空,缓解上腹胀和恶心。薄荷油(主要成分薄荷醇)可作为天然的平滑肌钙离子通道阻滞剂,解除肠道痉挛,缓解IBS患者的腹痛和腹胀,因而被多国指南推荐为一线用药。
经典方剂:如白术、白芍、防风、陈皮用于肝郁脾虚型IBS,能抑肝扶脾、解痉止痛;木香、枳壳、乌药则能行气导滞,显著改善便秘型IBS患者的腹胀和排便困难。
▸ 中医外治法:针灸与穴位贴敷
针灸刺激特定穴位(如天枢、足三里、大肠俞、上巨虚),可调节自主神经平衡,促使胃肠激素(如胃动素、VIP)分泌趋于正常,实现肠道动力的双向调节。
穴位贴敷(如用生姜泥或健脾温肾中药贴敷神阙穴/肚脐)则借助药物透皮吸收与经络传导直达病所。临床研究显示,生姜热敷脐部可有效预防并缓解卧床患者(如急性心肌梗死者)的腹胀与便秘,且无全身性副作用。
1
微生物组检测在腹胀便秘背景下能揭示的信息
对于频繁或持续腹胀的人群,粪便微生物组检测报告可提供如下参考:
• 微生物多样性: 慢性胃肠症状患者有时会观察到较低的多样性,但这并非腹胀特有。这可以指导逐渐谨慎地重新引入不同纤维。
• 相对丰度: 甲烷相关信号升高可能与便秘为主的模式相符。某些有益类群(如双歧杆菌)含量偏低,可能反映了饮食、抗生素史或其他因素。
• 发酵潜力: 分类模式可能指示其碳水化合物发酵能力极强;如果与敏感性结合,这有助于塑造饮食试验。
• 潜在失衡的标志: 部分特征显示其易产生炎症或硫化物,因此应密切关注诱因和耐受性。
微生物组检测多以粪便样本为主,用于表征微生物多样性及细菌(有时也包括其他生物)的相对丰度。不同方法差异明显:不少检测采用16S rRNA基因测序分析细菌类群;也有部分采用散弹式宏基因组学,捕捉更广泛的微生物并推断功能通路。结果可能呈现多样性指标、特定群体潜在过度生长,以及与胀气、便秘或腹泻等症状相关的模式(往往为松散关联)。
在16S检测方面,数据库更庞大、模型构建时可纳入的因素更多,因而敏感性与稳定性通常更强。宏基因组则能识别真菌、毒力基因及部分代谢相关基因,从而更全面了解微生物并推断其功能。
需要注意的是,微生物组检测不能用于诊断SIBO或排除其他医疗状况;但当症状持续、且需要反复调整管理方案时,它可帮助进行个体化规划。
2
哪些时候可以考虑微生物组检测?
并非所有腹胀患者都需要做微生物组检测。很多人通过日常调整并在必要时进行简短的临床评估即可改善。但若符合以下情况,补充相关信息可能会更有帮助:
在这些情况下,结合临床评估与个性化肠道微生物组报告的仔细审查,有助于指导有针对性的营养选择和微生物支持策略。目标不是“治疗检测结果”,而是将数据与症状、饮食和生活方式整合成一个连贯的计划。
3
决策支持:微生物组检测何时有意义?
当信息能改变您下一步的行动时,测试最有价值。
• 持续的不确定性: 你尝试过第一线策略(比如慢吃、减少碳酸饮料、优化排便、基础碳水化合物-乳糖试验),但都没有明确的答案。
• 反应不一: 有些改变能稍微改善,但症状会反复出现;目前尚不清楚是否应该增加纤维、更换纤维类型,还是继续避免。
• 便秘为主症状: 甲烷相关模式的证据支持关注运输时间和特定微生物方法。
• 抗生素后或感染后转变: 了解多样性和相对丰度有助于重新引入阶段并支持恢复。
• 复杂的饮食或限制: 客观的洞察有助于战略性地重建饮食多样性,避免不必要的回避。
相反,如果你的腹胀是轻微的,明显与暴饮暴食或汽水有关,并且通过基本调整就能缓解,检测效果可能不会太大。同样,如果出现明显症状,医疗评估优先于任何择期检测。
4
胃肠专科就诊咨询的帮助
胃肠专家咨询将对您的症状模式与可能诱发机制进行评估和对应。典型的就诊和随访可能包括:
• 明确目标:哪些结果最重要——是减少胀气、减少不适日、更明确的诱因,还是改善肠道规律?
• 症状日记/饮食记录: 在预约前后进行简短记录有助于识别时间模式(例如,与每日进食节律或便秘相关的下午-傍晚胀痛)。
• 选择性检测:如前所述,可能会根据风险、病史和检查安排针对性的化验或微生物测试,呼气测试等。
• 管理试验:指导性饮食调整(例如,FODMAP 轻量法并重新引入)、肠道优化(补水、可溶性纤维或渗透剂治疗便秘),或在适当情况下支持肠道蠕动。
• 微生物组及辅助见解:可选的微生物组检测可用于制定下一步,尤其是在反应部分或非典型时。
• 后续与迭代: 在规定的间隔后回顾进展,根据反应调整,避免长时间不必要的限制。
这一流程强调协作与灵活调整,而不只是追逐症状。它要把机制理清:气体来源可能与肠黏膜受损有关,饮食可能导致发酵增加并影响肠道蠕动,微生物失衡则可能与炎症或结构性问题相关。明确这些因素后,腹胀治疗方案便能更有针对性地选择。
5
管理腹胀的循证策略
管理与干预通常不依赖单一因素。相反,结合符合个体生理特点与偏好的多项调整往往效果更佳。潜在组成包括:
• 饮食行为:吃得更慢;彻底咀嚼;均匀间隔的用餐;限制碳酸饮料的使用;避免过量口香糖或硬糖,以免增加吸入空气。
• 靶向饮食试验:短暂、结构化的低 FODMAP 阶段,随后逐步重新引入以确定个人耐受性;如果呼气测试或病史支持不耐受,则要求乳糖或果糖限制;在工艺早期关注糖醇(山梨醇、甘露醇)和高度可发酵的纤维。
• 纤维:如果便秘,应优先选择可溶性纤维(例如部分水解的瓜尔胶、车前子)和充足的水分摄入。高不可溶性纤维可能会加重某些人的症状。
• 粪便调节:对于慢性便秘,建议在临床医生指导下使用循证渗透剂,必要时进行盆底评估,并定期活动以支持肠道蠕动。
• 肠道-大脑支持:减压、膈肌呼吸以及认知行为或肠道导向催眠疗法可以降低内脏敏感度,改善部分患者的症状控制。
• 其他:薄荷油肠涂胶囊有一定证据可能缓解与IBS相关的不适。西甲硅油在某些情况下或可帮助减轻胀气。益生菌可作为试验性选择,但效果会因菌株和个体差异而不同;最好结合临床与微生物组背景来选择合适的菌株。
• 医疗治疗:如果怀疑并确诊 SIBO,有时会与促进肠道蠕动的同时使用靶向抗生素或草药方案;如果发现胆汁酸腹泻,胆汁酸结合剂可能有帮助;如果存在胃排空延迟,可以考虑促动力学策略。
需要强调的是,这并非“一刀切”治疗。关键在于把治疗选择与驱动你症状的机制对齐,并持续、系统地重新评估。
腹胀与便秘,看似是日常生活中微不足道的“小毛病”,实则是人体内部复杂生态系统失衡的警报。从肠道内数以万亿计的微生物,到穿梭于神经突触间的5-羟色胺;从女性生命周期中起伏的雌激素,到内脏高敏、腹膈肌协同失调,从肠道激素的紊乱,再到产甲烷菌等微生态的失衡,每一个环节都相互交织,互为因果。大脑与肠道之间无声的对话,每一个环节的微小偏差都可能演变为令人痛苦的临床症状。
面对这种复杂的疾病网络,仅靠单一的泻药或促动力药物往往只能“治标”,且长期使用可能带来依赖与副作用。未来治疗方向应走向更精准、更综合。
通过低FODMAP饮食减少发酵底物,结合特定益生菌株与益生元重塑微生态;再辅以运动与心理干预,打破脑-肠恶性循环。同时充分发挥中医药多靶点、双向调节的优势,才能真正从“缓解症状”迈向“恢复稳态”的根本转变。
随着微生物组学测序技术普及以及人工智能在医疗数据分析中的应用,我们有望实现真正的精准医疗:基于个人肠道菌群图谱、基因型与代谢特征,制定专属的益生菌组合、饮食方案和药物干预策略。
对广大受困扰的患者,尤其处于特殊生理阶段的女性而言,理解疾病机制是战胜疾病的第一步。保持良好心态,科学调整饮食,合理补充膳食纤维并选择合适的益生菌;必要时及时咨询消化科与心理科医生。通过重建肠道微生态与脑-肠轴的平衡,才能重新获得轻松顺畅的健康生活。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
中华医学会消化病学分会胃肠动力学组,功能性胃肠病协作组,食管疾病协作组.中国慢性便秘临床诊断与治疗规范[J].中华消化杂志,2024, 44(10): 649-658. DOI:10.3760/cma.j.cn311367-20240930-00373.
Napolitano M, Fasulo E, Ungaro F, Massimino L, Sinagra E, Danese S, Mandarino FV. Gut Dysbiosis in Irritable Bowel Syndrome: A Narrative Review on Correlation with Disease Subtypes and Novel Therapeutic Implications. Microorganisms. 2023 Sep 22;11(10):2369.
Zhang S, Wang R, Li D, Zhao L, Zhu L. Role of gut microbiota in functional constipation. Gastroenterol Rep (Oxf). 2021 Aug 6;9(5):392-401.
Almonajjed MB, Wardeh M, Atlagh A, Ismaiel A, Popa SL, Rusu F, Dumitrascu DL. Impact of Microbiota on Irritable Bowel Syndrome Pathogenesis and Management: A Narrative Review. Medicina (Kaunas). 2025 Jan 13;61(1):109.
Feng C, Gao G, Wu K and Weng X (2024) Causal relationship between gut microbiota and constipation: a bidirectional Mendelian randomization study. Front. Microbiol. 15:1438778.
Shaikh SD, Sun N, Canakis A, Park WY, Weber HC. Irritable Bowel Syndrome and the Gut Microbiome: A Comprehensive Review. J Clin Med. 2023 Mar 28;12(7):2558.
Mamieva Z, Poluektova E, Svistushkin V, Sobolev V, Shifrin O, Guarner F, Ivashkin V. Antibiotics, gut microbiota, and irritable bowel syndrome: What are the relations? World J Gastroenterol. 2022 Mar 28;28(12):1204-1219.
Bercik P. The Brain-Gut-Microbiome Axis and Irritable Bowel Syndrome. Gastroenterol Hepatol (N Y). 2020 Jun;16(6):322-324.
Ohkusa T, Koido S, Nishikawa Y, Sato N. Gut Microbiota and Chronic Constipation: A Review and Update. Front Med (Lausanne). 2019 Feb 12;6:19.
当我们谈论人体微生态时,最先想到的往往是肠道。但你是否知道,我们的口腔其实是人体内多样性仅次于肠道的第二大微生物栖息地?
近年来越来越多研究提示,口腔作为人体与外界环境交互的重要门户,栖息着高度复杂和动态的微生物群落,即口腔微生物组。这一微生态系统在维持宿主口腔乃至全身健康有着比想象中更深的联系。
现代人常见的龋病、口臭、牙周炎等问题,很多时候都不是某一种“坏菌”突然出现,而是原本受控的微生态关系发生倾斜。
想真正理解口腔菌群,关键不只是记住有哪些细菌,而是理解它如何定植、如何维持平衡,又如何在失调时影响口腔与全身。
本文将从口腔微生物组的组成、建立过程、共生稳态与失调机制出发,帮助大家建立一个更清晰的理解框架。
编者按:
本文是一篇基于近年综述与代表性研究整理的科普性综述,重点讨论口腔微生物组的构成、稳态与失调,以及其与部分全身疾病之间的研究联系。
需要特别说明的是,本文涉及癌症、认知衰退与痴呆、类风湿性关节炎、糖尿病等内容时,所引用的许多证据目前仍以观察性研究和相关性研究为主,不能简单理解为直接因果关系。不同主题的证据成熟度并不一致,相关机制也仍在持续研究中。
全文分上下两部分,本文为上篇;下篇将进一步讨论口腔微生物组与系统性疾病的研究进展、潜在机制、干预策略及临床意义。
从生态学视角来看,口腔微生物组是一个由细菌、古菌、真菌、病毒和原生动物等多种微生物组成的复杂生态系统。这些微生物以生物膜的形式存在牙面、舌背、黏膜、龈沟等不同部位,与宿主长期共处,并共同维持口腔环境的稳定。
换句话说,口腔微生物并不是偶然闯入的污染者,而是从出生起就开始定植的长期居民。
超700种菌:谁构成了口腔群落的核心骨架?
据估计,一般健康的人类口腔及上呼吸消化道中可发现超过700种细菌。
注:其中约58%已被正式命名,16%虽可培养但尚未命名,另有26%仅作为“不可培养的系统发育型”被识别。
在这些细菌中,厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes)、变形菌门(Proteobacteria)、放线菌门(Actinobacteria)、梭杆菌门(Fusobacteria)和螺旋体门(Spirochaetes)是六个最主要的门类,占据了口腔细菌群落的绝大部分。
口腔微观:不同位置,住着不同的微生物
口腔独特的解剖结构,包括非脱落的硬组织表面(如牙齿、修复体)和持续脱落的软组织表面(如颊黏膜、舌、腭),以及流动的唾液,为不同微生物提供了多样化的生态位。这些生态位在物理化学条件(如pH、温度、氧化还原电位、营养可得性)上存在显著差异,从而赋予了口腔“空间异质性”,并塑造了具有高度位点特异性的微生物群。
例如:
口腔核心微生物组
尽管个体间差异巨大,但在健康人群中,不同口腔位点存在着相对稳定的“核心微生物组”,这些核心成员负责维持口腔的功能稳定性和生态平衡。例如,研究发现,在健康个体的多个口腔位点中,Streptococcus mitis、Gemella haemolysans、Granulicatella adiacens 几乎普遍存在。
除了细菌,口腔中还存在“核心真菌组”,其中念珠菌属(Candida)最为常见,其次是枝孢属(Cladosporium)、短梗霉属(Aureobasidium)等。
口腔病毒组(virome)则以噬菌体为主,它们通过调节细菌宿主的种群动态和基因交换,在塑造口腔微生物群落结构中发挥着关键作用。
古菌(archaeome)虽然丰度较低,但产甲烷菌如Methanobrevibacter oralis在牙周炎等病理状态下丰度会增加,提示其可能参与疾病过程。
综上,口腔菌群是一个多物种、多领域、高度结构化和功能化的微生态系统。它与宿主共同进化,形成了一个被称为“共生体”的超级有机体。理解这个微生态系统的组成、结构及其与宿主的相互作用,是揭示其在口腔及全身健康与疾病中作用的基础。
健康的口腔里,微生物群落是如何运转的?
在健康状态下,口腔微生物组与宿主之间维持着“共生”或“健康平衡”的和谐关系。
在这个状态下,多样化的微生物群落通过协同作用,共同执行多种有益功能。它们参与营养物质的初步消化与转化,例如,某些口腔细菌能够代谢膳食中的硝酸盐,产生具有血管舒张和抗菌作用的亚硝酸盐和一氧化氮,这不仅有助于调节血压,还能抑制致病菌的生长。
此外,共生微生物通过“定植抵抗”机制,占据口腔内的生态位,与外来病原体竞争营养和附着位点,从而构成了抵御感染的第一道生物防线。
口腔微生物组与宿主健康之间的复杂相互作用
Dame-Teixeira et al., 2025, 第1章
一旦打破生态平衡,问题悄然出现
这种微妙的平衡可能被多种因素打破,导致向“失调”状态的转变。
年龄、感染、环境因素、生活习惯(如高糖饮食、吸烟、饮酒)以及抗菌药物的不当使用,都会对口腔微生物组施加选择压力,破坏其多样性和稳定性。
例如,高糖饮食会促进产酸菌(如变形链球菌)的过度生长,导致口腔环境酸化,从而引发龋齿。同样,宿主的全身性疾病,如糖尿病、高血压、肥胖等代谢综合征,也会通过改变唾液成分、影响免疫应答等方式,加剧口腔微生物的失调。
近年来,随着高通量技术的发展,我们对口腔微生物组的认识正在迅速深化。自2010年以来,相关研究文献数量呈指数级增长(下图)。
1950年~2023年间,以“口腔微生物组”
为主题的已发表论文数量变化趋势
编辑
Dame-Teixeira et al., 2025, 第1章
图中显示,自2005年左右,尤其是2010年以后,相关研究呈现指数级增长。
这些研究从单纯的物种鉴定(它们是谁?)发展到功能分析(它们在做什么?),并整合宏基因组学、宏转录组学、宏蛋白质组学和代谢组学等多组学数据,逐步帮我们理解整个口腔微生态奠定了证据基础。
这些进展不仅揭示了口腔微生物组的复杂性,也为开发基于调节微生物组的个体化预防和治疗策略提供了新的契机。
人类口腔微生物组的建立是一个从生命最早期开始,贯穿一生的动态过程。它并非与生俱来,而是在出生后通过与环境的持续互动逐步获得和演替的。这一过程受到一系列内在(宿主相关)和外在(环境相关)因素的复杂调控,共同塑造了每个个体独特而又具有共性的口腔微生态系统。
人类从胎儿到老年的生命历程示意图
编辑
改编自 DOI: 10.1007/978-3-031-79146-8_2
生命早期的初始定植
出生后,喂养方式成为塑造口腔微生物组的另一个重要因素。婴儿吃进去的不仅是营养,也是微生态的“种子”与“养料”。
母乳:不仅是营养的来源,更是一个动态的生物系统,含有丰富的微生物、人乳寡糖(HMOs)、免疫球蛋白和抗菌蛋白。母乳喂养能够将母亲的特定菌株(如双歧杆菌属)传递给婴儿,为其肠道和口腔“播种”有益菌 。
HMOs作为益生元,能够选择性地促进有益菌(尤其是Bifidobacterium infantis)的生长,同时抑制病原体的黏附 。因此,与配方奶喂养的婴儿相比,母乳喂养婴儿的口腔微生物组通常具有更高的多样性,其中部分变化被认为更接近健康相关模式。
辅食:随着固体食物的引入,婴儿的口腔微生物组会经历又一次重大转变,多样性显著增加,以适应更复杂的碳水化合物和营养物质。
从婴儿期到成年的演替过程
随着个体的成长,口腔的物理环境也在不断变化,这为微生物的演替提供了新的生态位。其中,牙齿的萌出是一个重要阶段。
► 无牙期:以软组织表面为主
在无牙期,口腔内只有软组织黏膜表面,主要定植的是早期定植菌,例如:
► 约 6–10 个月:第一颗乳牙萌出
大约在6-10个月时,第一颗乳牙的萌出为微生物提供了独特的“非脱落表面”,使得能够形成更稳定、更复杂的生物膜(牙菌斑)。
随着乳牙列的完全建立,口腔微生物的多样性显著增加,例如下列菌群开始繁盛:
编辑
► 混合牙列期与恒牙期:厌氧菌定植条件增强
进入混合牙列期和恒牙期,口腔的解剖结构变得更加复杂,为更多厌氧菌的定植创造了条件。
牙龈沟的形成提供了一个低氧、富含蛋白质(龈沟液)的微环境,特别适合严格厌氧和蛋白水解菌(如牙周病相关菌群)的生长。
在这一过程中,微生物群落的组成从以革兰氏阳性兼性菌为主,逐渐向包含更多革兰氏阴性厌氧菌的成熟群落演替。
► 青春期:激素变化驱动的第二次转变
青春期是另一个重要的转变阶段。性激素(如雌二醇、孕酮和睾酮)水平的急剧上升,会直接或间接地影响口腔微环境。
这些激素可以被某些口腔细菌利用作为生长因子,同时也会改变牙龈组织的血管通透性和炎症反应,导致所谓的“青春期牙龈炎” 。
这期间,龈下微生物组中与牙龈炎相关的菌群丰度会增加,例如:
成人口腔内不同生态位及其优势细菌类群
编辑
DOI: 10.1007/978-3-031-79146-8_2
牙菌斑和舌部具有高微生物多样性,而口腔黏膜的多样性相对较低。
影响微生物组获得与建立的其他因素
除了上述生理阶段的变化,还有多种因素持续塑造着口腔微生物组的构成。
✦遗传与宿主防御:身体“筛选”哪些菌容易留下
宿主的遗传背景决定了其免疫系统的特征,如唾液中抗菌蛋白(溶菌酶、乳铁蛋白等)的含量和活性、主要组织相容性复合体(MHC/HLA)的类型等。这会影响哪些微生物更容易定植下来,并长期保留下来。
例如,唾液淀粉酶基因(AMY1)拷贝数较高的人,其唾液中普雷沃菌属和卟啉单胞菌属的水平也更高。
✦社会与环境接触:微生物在人与人/动物之间流动
口腔微生物会通过接触持续传播。
婴儿早期主要受母亲影响,随着成长,兄弟姐妹、照料者、宠物和集体环境的作用也会逐渐增强。
编辑
✦药物使用:抗生素改变菌群起跑线
抗生素的使用,尤其是在生命早期,会对口腔微生物组的建立产生深远影响。
广谱抗生素会无差别地杀灭有益菌和有害菌(好坏一起杀),可能导致菌群失调,并为机会致病菌(如念珠菌)的过度生长创造条件。
✦口腔卫生与生活方式:直接改变牙菌斑与口腔环境
口腔卫生习惯(如刷牙、使用牙线)直接影响牙菌斑的量和组成。
不良的口腔卫生会导致菌斑堆积,促进厌氧菌和致病菌的生长。吸烟和饮酒等生活方式因素也会通过改变口腔的氧化还原电位、pH值和免疫反应,导致微生物组失调,增加牙周病和癌症的风险。
✦成年稳定与老年再变化:从平衡到更易失衡
进入成年期后,健康口腔微生物组通常进入相对稳定阶段。
然而,随着年龄的增长,生理性衰老(如唾液流速下降、免疫功能减退)以及慢性疾病和多重用药的累积效应,会再次改变这种平衡,可能导致机会性病原体(如肠杆菌科、葡萄球菌属)的丰度增加,从而增加老年人患口腔及全身性疾病的风险。
总的来说,口腔微生物组并非一成不变,而是在多种因素作用下不断调整。接下来,需要进一步理解它与宿主之间如何形成并维持这种共生平衡。
经过数千年的共同进化,人类与栖居其身的微生物群落形成了一种深刻的互利共生关系。种共生关系主要通过微生物稳态和宿主稳定性的相互支撑来实现。
微生物稳态:群落内部的协作与拮抗
在健康状态下,口腔微生物并不是各自为战,而是形成了一个相互作用网络,这个网络让菌群具备两种能力:
这种稳态主要靠两类关系共同维持:互利协作与相互拮抗。
↗互利关系:代谢协作与交叉喂养
口腔微生物的主要营养来源于宿主饮食、唾液和龈沟液中的大分子,如糖蛋白和蛋白质。
单个微生物菌种往往“吃不完整”,不具备完全降解这些复杂底物的能力,因此需要不同物种之间通过酶促互补进行代谢合作。这种现象被称为“交叉喂养”,即一个物种的代谢产物成为另一个物种的营养底物。
——典型例子:产酸菌 × 耗酸菌
编辑
这个协作带来两点好处:
整体上,这类代谢网络会提升群落效率,增强了其稳定性。
↘拮抗关系:竞争与抑制
口腔生态位很拥挤,共生菌为了守住地盘,也会用各种方式压制竞争者,尤其是潜在致病菌。这些拮抗作用是维持微生物平衡的关键。
——产生细菌素:定向“抑菌武器”
许多共生菌能够产生小分子的抗菌肽,即细菌素,它们可以特异性地杀灭或抑制亲缘关系较近的细菌。
例如,唾液链球菌(Streptococcus salivarius)产生的Salivaricin(一种细菌素)可以抑制引起咽喉炎的化脓性链球菌(S. pyogenes)。
从无龋个体中分离出的Streptococcus dentisani也能产生细菌素,有效抑制变形链球菌(S. mutans)和具核梭杆菌(F. nucleatum)等致病菌的生长。
——产生过氧化氢:用“氧化压力”压制对手
多种共生链球菌(如S. sanguinis, S. gordonii, S. oralis)能够通过丙酮酸氧化酶产生过氧化氢。
过氧化氢(H₂O₂)对许多无法有效应对氧化应激的厌氧致病菌(如P. gingivalis)和产酸菌(如S. mutans)具有强大的抗菌活性。这种机制在早期菌斑形成和应对糖冲击时尤为重要。
——产碱缓冲 pH:把酸中和掉
除了交叉喂养,一些细菌还能通过代谢氨基酸(如精氨酸)和尿素来产生氨(NH₃),从而中和酸性产物,提高局部pH值。
例如,精氨酸脱亚胺酶系统(ADS)在多种链球菌和放线菌中存在,它降解精氨酸产生氨,不仅能缓冲pH,其代谢过程本身还会消耗精氨酸,从而抑制依赖精氨酸的S. mutans的毒力表达。
——群体感应信号的干扰
微生物通过释放和感知被称为“自诱导物”的信号分子来进行种内和种间的通讯,这一过程称为群体感应(QS)。QS系统调控着生物膜形成、毒力因子产生等多种群体行为。
一些共生菌能够干扰致病菌的QS信号。例如,部分S. gordonii菌株可以抑制S. mutans的CSP信号肽,从而削弱其形成生物膜和产生细菌素的能力。
口腔健康条件下微生物间的相互作用机制
编辑
doi: 10.1007/978-3-031-79146-8_3
维持口腔稳态的关键:定植抵抗与免疫稳态
宿主与口腔微生物组之间的共生关系,不仅体现在微生物群落内部的自我调节,更体现在其与宿主免疫系统的协同作用上,共同维持宿主的稳定与健康。
◉ 定植抵抗:常驻菌先占位,外来菌难落脚
健康的常驻微生物群通过“占位”效应,物理性地占据了口腔黏膜和牙齿表面的附着位点,从而阻止了外来病原体的入侵和定植。这种现象被称为“定植抵抗”。
它主要通过两种方式实现:
这种由微生物组提供的天然屏障,是宿主抵御感染的第一道防线。
◉ 免疫稳态与耐受:不是不管,而是受控共存
口腔黏膜持续暴露于大量的微生物及其抗原之下,但通常不会引发剧烈的炎症反应,这表明宿主免疫系统已经进化出一种与共生微生物和平共处的机制,即免疫耐受。
这种耐受并非免疫系统的“无视”,而是一种主动的、精细调控的平衡状态:既控制微生物,又避免过度炎症伤害自己。
共生菌如何帮助维持这种平衡?
共生微生物的某些分子信号(MAMPs,可理解为“微生物特征信号”)会被宿主的模式识别受体识别(如Toll样受体,TLRs),持续地“教育”和“校准”宿主的免疫系统。在健康状态下,这种相互作用倾向于诱导一种“促耐受”的免疫环境,主要体现在:
——诱导调节性T细胞(Treg)
共生菌及其代谢产物(如短链脂肪酸)可以促进Treg细胞的分化。
Treg细胞通过分泌如IL-10、TGF-β等抗炎细胞因子,来抑制过度的炎症反应,防止对共生菌产生有害的免疫攻击。
——促进分泌型IgA(sIgA)产生
sIgA是黏膜免疫的主要抗体。它能够“包裹”微生物,阻止其黏附到上皮细胞表面并侵入组织,同时不激活强烈的炎症反应。
这种机制常被理解为温和的免疫排斥:既能控制微生物数量,又能避免组织损伤。
——强化上皮屏障
共生菌能够刺激上皮细胞产生黏蛋白和抗菌肽(AMPs),增强黏膜的物理和化学屏障功能,进一步限制微生物与宿主免疫细胞的直接接触。
口腔微生物群与宿主免疫系统的相互作用机制
编辑
doi: 10.1007/978-3-031-79146-8_3
口腔微生态具备定植抵抗、免疫耐受和屏障防御等多重稳定机制,但并不是建立起来就能一直维持下去,真正日复一日改写这套系统的,往往是那些看似普通的生活因素——尤其是饮食。下一章我们来具体了解。
人类饮食变迁与口腔微生物组的共同进化
🪨 旧石器时代
高纤维、低精制糖
→ 菌群多样性更高,龋病较少
🌾 新石器时代
谷物进入主食,碳水摄入增加
→ 产酸相关菌增多,龋病开始上升
🏭 工业革命至今
精制糖和加工食品大量增加
→ 产酸、耐酸菌占优势,微生态更易失衡
人类历史进程中饮食结构的变化与口腔微生物组的演变
编辑
doi: 10.1007/978-3-031-79146-8_4
宏量营养素与微量营养素调控口腔微生态
食物中的宏量营养素(碳水化合物、蛋白质、脂肪)和微量营养素(维生素、矿物质)通过多种途径影响口腔微生物组和宿主反应。
◯ 碳水化合物:一把双刃剑
碳水化合物是口腔微生物最主要的能量来源,但其类型和加工程度决定了其对口腔健康的影响。
——可发酵碳水(尤其精制糖/蔗糖):更易推动失调
可发酵碳水化合物,特别是蔗糖等精制糖,能被口腔中的糖酵解细菌(如变形链球菌、乳杆菌)迅速代谢,产生大量有机酸(主要是乳酸),导致牙菌斑pH值急剧下降。
频繁的酸攻击会破坏牙釉质的矿物质平衡,引发脱矿,最终形成龋洞。
——蔗糖:不仅产酸,还让菌斑黏更厚难清除
变形链球菌还能利用蔗糖合成不溶性的胞外多糖(EPS),这些黏性的葡聚糖构成了生物膜的骨架,不仅促进了细菌的黏附和聚集,还形成了一个扩散屏障,使酸性产物更难被唾液中和,从而加剧了局部的酸性微环境。
——复杂碳水/膳食纤维:整体更友好
复杂碳水化合物,如全谷物、蔬菜和豆类中富含的膳食纤维,对口腔健康则更为有益。这些纤维不易被口腔细菌直接发酵,因此不会引起pH的剧烈下降。
更重要的是,富含纤维的食物通常需要更多的咀嚼,这能刺激唾液分泌,增强唾液的冲刷和缓冲作用,有助于清除食物残渣和中和酸性物质。
编辑
◯ 脂肪和蛋白质:来源与平衡是关键
脂肪和蛋白质对口腔微生物组的影响相对复杂,且与其来源密切相关。
——脂肪:不同类型,炎症倾向不同
饱和脂肪和反式脂肪,常见于加工食品、动物脂肪和部分植物油中,被认为是促炎性的。
不饱和脂肪酸,特别是来自鱼油、坚果和橄榄油的ω-3多不饱和脂肪酸,具有抗炎特性。
——蛋白质:既是宿主营养成分,也可能被某些致病菌利用
蛋白质是构成唾液和龈沟液的重要成分,也是许多蛋白水解型牙周致病菌(如P. gingivalis)的主要营养来源。
在牙周炎状态下,富含蛋白质的龈沟液为这些病原体的生长提供了有利条件。
然而,饮食中的蛋白质来源同样重要。有研究指出,过量摄入动物蛋白可能与更高的炎症水平相关,而植物蛋白则可能更有益于健康。
编辑
doi: 10.1007/978-3-031-79146-8_4
◯ 微量营养素:免疫与修复的调节剂
维生素和矿物质等微量营养素虽然需求量小,但在维持口腔组织完整性和调节免疫功能方面发挥着不可或缺的作用。它们的缺乏会直接损害口腔健康。
——维生素C(抗坏血酸)
是胶原蛋白合成所必需的,对维持牙龈和牙周膜的结构完整性至关重要。
严重缺乏维生素C会导致坏血病,其典型症状之一就是牙龈出血和牙齿松动。
维生素C还是一种重要的抗氧化剂,有助于中和炎症过程中产生的活性氧(ROS),保护牙周组织免受氧化损伤。
——维生素D
在钙磷代谢和骨骼健康中起着核心作用。它能促进牙槽骨的矿化,并具有重要的免疫调节功能,可以抑制过度的炎症反应。
维生素D缺乏与牙周炎的严重程度增加和骨质疏松相关。
——B族维生素
参与多种细胞代谢过程,其缺乏可导致多种口腔黏膜疾病,如舌炎、口角炎和复发性阿弗他溃疡。
——抗氧化剂
抗氧化剂(维生素A、E、类胡萝卜素、多酚等)广泛存在于水果、蔬菜、茶和红酒中。这些物质能够清除自由基,减轻氧化应激,从而保护细胞免受损伤,对预防牙周炎和口腔癌具有积极意义。
综上所述,饮食不仅是口腔疾病(尤其是龋病和牙周炎)发生的重要风险因素,也是维持口腔微生态平衡和宿主健康的关键调控手段。一个均衡的、富含全食品、纤维、维生素和抗氧化剂,同时限制精制糖和饱和脂肪的饮食模式,是促进口腔共生、预防疾病的基石。
胃肠道是人体内最庞大、最复杂的微生物生态系统,从口腔延伸至肛门。传统上,口腔和肠道被视为两个相对独立的微生物栖息地,由胃酸、胆汁和物理距离等屏障隔开。然而,近年的研究揭示了两者之间存在着密切而动态的联系,这一联系被称为“口腔–肠道轴”(Oral-Gut Axis)。
通过该轴,口腔微生物及其代谢产物能够影响肠道微生态和宿主健康,反之亦然。理解口腔–肠道轴的机制,有助于我们从更整体的角度看待多种慢性炎症性疾病、代谢性疾病乃至癌症的相关研究线索。
口腔与肠道微生物组的生物地理学特征
——口腔和肠道的菌群,并不一样
在健康状态下,胃肠道沿线的微生物群落表现出显著的体位特异性。每一段消化道的环境都不一样,比如:
这些差异决定了什么样的细菌适合住在哪里。
比如,胃里的环境酸性很强,细菌数量相对较少;而到了结肠,细菌数量就会大幅增加,种类也更加丰富。
胃:约10³-10⁴/mL 结肠:10¹¹-10¹²/g
人体消化道不同部位的微生物群落分布示意图
编辑
doi: 10.1007/978-3-031-79146-8_5
——但它们之间并不是完全隔绝的
尽管存在显著的体位特异性,但在健康个体中,口腔和肠道之间仍存在一定程度的微生物重叠。研究发现,一些常见的口腔细菌,如:
也可能在肠道中被检测到,尽管丰度通常很低。这表明,口腔微生物向肠道的“转位”是一个生理现象。
问题不在于会不会进入,而在于它们进入后能不能存活、定植和扩张。
口腔微生物向肠道的转位机制
——口腔微生物主要通过两条途径到达肠道
编辑
——为什么健康人通常没事?
虽然口腔细菌确实可能到达肠道,但健康人的肠道并不会轻易让它们安家。
在健康状态下,肠道自身的防御机制——包括完整的黏膜屏障、强大的免疫系统(肠道相关淋巴组织,GALT)以及由常驻肠道菌群构成的“定植抵抗”
这些机制会共同作用,限制外来细菌在肠道中长期生存。因此,口腔菌在健康肠道中通常只是匆匆过客。
口腔–肠道轴失调与疾病
当宿主健康状况发生改变时,口腔–肠道轴的平衡可能被打破,导致口腔细菌在肠道中的“异位定植”,这与多种疾病的发生发展密切相关。
✦ 肠道疾病:口腔细菌可能火上浇油
在炎症性肠病(IBD,包括克罗恩病和溃疡性结肠炎)患者中,肠道黏膜屏障功能受损,通透性增加。
研究发现,IBD患者的肠道中,常常能检测到更多口腔来源的细菌,例如:
具核梭杆菌不仅在口腔中发挥作用,还可能通过口腔–肠道轴影响全身健康。
编辑
<来源:谷禾口腔菌群检测数据库>
动物实验也提供了进一步证据。
如果把患有牙周炎小鼠的口腔菌群,移植给无菌小鼠,后者会出现更明显的肠道炎症,尤其是与Th17细胞相关的免疫反应增强。而这种反应,正是IBD的重要发病机制之一。
提到口腔细菌与疾病的关系,具核梭杆菌(F. nucleatum)是一个非常典型的例子。
研究发现,具核梭杆菌在结直肠癌(CRC)组织中高度富集,并通过其黏附素FadA与肿瘤细胞的E-cadherin结合,进一步激活Wnt/β-catenin信号通路,促进肿瘤增殖。
简单说,就是它可能帮助肿瘤细胞长得更快、扩增得更多。这也说明,某些原本生活在口腔里的细菌,一旦进入异常环境,可能不只是旁观者。
✦ 肝脏疾病:口腔细菌也可能影响肝脏
在肝硬化和非酒精性脂肪性肝病(NAFLD)患者中,也观察到肠道中口腔细菌的富集。
这可能与肝功能受损导致胆汁酸代谢异常和肠道屏障功能下降有关。口腔细菌及其产物(如LPS)通过门静脉系统进入肝脏,可能加剧肝脏的炎症和纤维化进程。
✦ 系统性炎症性疾病:可能牵动全身免疫
在类风湿关节炎(RA)等自身免疫病中,口腔–肠道轴也可能扮演了重要角色。
牙周炎是类风湿关节炎的已知风险因素。口腔病原体(如P. gingivalis)不仅能在口腔局部诱导产生针对瓜氨酸化蛋白的抗体(ACPA),还可能转位至肠道,进一步扰乱肠道免疫系统,加剧全身性自身免疫反应。
口腔中的慢性炎症,可能通过肠道这个“中转站”,放大成全身性问题。
✦ 口腔+肠道菌群:可能提示病情轻重
研究通过对唾液和粪便样本的微生物组成进行分析将牙周炎患者分为不同的口腔-肠道谱型。
牙周炎患者的口腔-肠道微生物谱聚类分析
编辑
doi: 10.1007/978-3-031-79146-8_5
某些谱型与更严重的临床症状(如高比例深牙周袋、牙齿缺失)相关,提示口腔与肠道微生物的特定组合可能预示着疾病的严重程度。
临床意义与展望
口腔–肠道轴的发现,为我们从一个更宏观、更系统的角度理解健康与疾病提供了新的框架。它强调了口腔健康对于维持肠道微生态平衡和预防相关疾病的重要性。
临床上,牙周炎患者的肠道微生物组中,与牙周病相关的口腔类群数量明显更高,且某些口腔菌(如F. nucleatum)在粪便中的丰度与牙周病的严重程度相关。
这提示,粪便中的口腔微生物特征可能成为评估口腔健康状况和预测相关系统性疾病风险的非侵入性生物标志物。
近年来,口腔微生物组的一个特定代谢功能受到了科学界的广泛关注:
将膳食中的硝酸盐(NO₃⁻)
还原为亚硝酸盐(NO₂⁻)
这一过程不仅是口腔微生态系统内部复杂代谢网络的一部分,更通过一个被称为“肠-唾液循环”的途径,对人体的口腔及全身健康产生深远的有益影响。
口腔细菌不仅是潜在的致病者,更是维持宿主生理稳态的重要合作伙伴。
硝酸盐的来源、肠–唾液循环
硝酸盐是自然界中广泛存在的含氮化合物,我们日常饮食中的绿叶蔬菜,如菠菜、生菜、芝麻菜、甜菜根,是其最主要的来源。
当我们摄入这些富含硝酸盐的食物后,约25%的硝酸盐会被肠道吸收进入血液循环。随后,一个有趣的循环开始了:血液中的硝酸盐被唾液腺主动摄取并浓缩,其浓度可比血浆高出10倍以上,然后随唾液分泌回口腔。
编辑
在口腔中,这些来自饮食和唾液的硝酸盐,被特定的口腔细菌利用。这些细菌拥有效率极高的硝酸盐还原酶,能将硝酸盐(NO₃⁻)还原为亚硝酸盐(NO₂⁻)。随后,含有亚硝酸盐的唾液被吞咽,进入胃肠道。在胃的酸性环境中,亚硝酸盐可以被非酶促地转化为一氧化氮(NO)和其他活性氮物种(RNS)。
部分未被转化的亚硝酸盐被小肠吸收进入血液,成为全身NO的循环储备库。最终,血液中大部分的NO和亚硝酸盐会被重新氧化为硝酸盐,再次进入肠-唾液循环。这一完整的通路确保了口腔和全身持续获得由微生物介导产生的亚硝酸盐和NO。
硝酸盐-亚硝酸盐-一氧化氮通路在口腔和全身健康中的作用示意图
编辑
Washio and Takahashi, 2025
这个关键步骤,人体自己做不了→依赖菌群
这里有一个很重要的点:
哺乳动物细胞自身并不擅长把硝酸盐变成亚硝酸盐,因此,这一关键步骤完全依赖于口腔中的微生物。
研究表明,口腔中的亚硝酸盐产生能力存在显著的个体间差异,这主要取决于口腔微生物组中“亚硝酸盐产生菌”的数量和活性。
口腔中的亚硝酸盐产生菌
通过琼脂覆盖培养法等技术,研究人员从唾液、牙菌斑和舌苔中分离并鉴定出多种具有硝酸盐还原能力的细菌。这些细菌大多是口腔中的常见共生菌,而非罕见物种,这表明亚硝酸盐的产生是健康口腔微生态的一项普遍功能。主要的亚硝酸盐产生菌包括:
例如奈瑟菌属,是口腔微生物组中的一种重要细菌,在硝酸盐还原过程中发挥关键作用。通过谷禾口腔菌群检测报告,可以了解到其具体丰度及其在口腔微生物组中的表现,部分奈瑟菌属如下:
编辑
<来源:谷禾口腔菌群检测数据库>
——舌苔后部是“核心工作区”
这些菌主要定植在舌背后部的低氧区域,这里为硝酸盐还原酶的活性提供了理想环境。研究发现,舌苔的亚硝酸盐产生活性通常高于牙菌斑,凸显了舌在这一通路中的核心地位。
编辑
持续摄入富含硝酸盐的饮食,不仅能提供底物,还能作为一种益生元,选择性地增加口腔中硝酸盐还原菌(如奈瑟菌属和罗氏菌属)的丰度,从而正向增强整个系统的亚硝酸盐生成能力。
亚硝酸盐对口腔健康有什么好处?
口腔微生物产生的亚硝酸盐及其下游产物一氧化氮,对维持口腔健康具有多重益处,尤其是在预防两大主要口腔疾病——龋齿和牙周炎方面。
◉ 预防龋齿
亚硝酸盐的防龋机制是多方面的:
——直接抗菌作用
亚硝酸盐在酸性条件下可质子化形成亚硝酸(HNO₂),后者能穿透细菌细胞膜,干扰其能量代谢和关键酶的功能。这对主要的致龋菌——变形链球菌(S. mutans)具有显著的抑制作用。
——抑制产酸
糖吃进去后,细菌产酸的能力可能会被部分压住。
龋齿的一个关键过程,就是细菌分解糖分后产酸,使口腔环境变酸,进而腐蚀牙齿。亚硝酸盐能够抑制牙菌斑微生物的糖酵解过程,从而减少有机酸的产生,减缓菌斑pH值的下降。研究表明,摄入富含硝酸盐的蔬菜汁可以显著缓冲食糖后的口腔酸性环境。
龋齿的发生与口腔内多种细菌的活动密切相关,通过监测口腔内的龋齿相关菌群丰度及是否超标,可以更好地掌握口腔微生物组的动态变化。
编辑
<来源:谷禾口腔菌群检测数据库>
——帮助菌群恢复平衡
亚硝酸盐对不同细菌的敏感性不同,它能抑制产酸/耐酸菌的生长,同时可能对硝酸盐还原菌影响较小或无影响。这种选择性压力有助于将失调的、致龋的微生物组向更健康的、共生的方向逆转。
——与乳酸代谢的生态协同
韦荣菌属等细菌在利用乳酸的同时进行硝酸盐还原。这一过程既消耗了致龋的乳酸,又产生了具有保护作用的亚硝酸盐,形成了一个精妙的负反馈调节环路,有助于维持口腔pH稳态。
◉ 预防牙周炎
亚硝酸盐和一氧化氮(NO)对牙周健康同样有益。
首先,它们对多种主要的牙周致病菌,如牙龈卟啉单胞菌(P. gingivalis)、中间普雷沃菌(P. intermedia)、具核梭杆菌(F. nucleatum),也具有抗菌活性。
其次,NO作为一种重要的信号分子,具有强大的血管舒张和抗炎作用。通过改善牙龈组织的微循环血流,NO有助于输送营养和免疫细胞,清除代谢废物,从而促进牙龈炎症的消退和组织修复。临床研究已表明,摄入富含硝酸盐的莴苣汁可以减轻慢性牙龈炎患者的牙龈炎症症状。
亚硝酸盐的影响,不止停留在口腔
通过肠-唾液循环,口腔微生物组的硝酸盐代谢功能超越了口腔局部,对全身健康,特别是心血管系统,产生了系统性的积极影响。
最核心的作用是调节血压
由口腔产生的亚硝酸盐进入循环系统后,在缺氧组织中被有效还原为NO。NO是内皮细胞产生的一种关键的血管舒张因子,能够松弛血管平滑肌,降低外周血管阻力,从而降低血压。
大量临床试验证实,补充膳食硝酸盐(如饮用甜菜根汁)能够显著降低高血压患者的血压。
编辑
一个很关键的证据:抗菌漱口水打断这条通路
重要的是,当使用抗菌漱口水清除口腔中的硝酸盐还原菌后,这种降压效应会明显减弱甚至消失,这证明了口腔微生物组在这一过程中的核心地位。因此,一个功能活跃的口腔硝酸盐还原菌群,可以作为内源性NO生成途径(依赖内皮NO合酶)的一个重要补充,尤其是在衰老或疾病状态下内皮功能受损时。
也就是说,口腔微生物组的功能状态,可能真的会影响全身血压调节。
其他潜在好处也在被关注
NO还具有改善运动表现、保护胃黏膜、增强认知功能等多种潜在益处。
例如,补充硝酸盐可以降低运动时的耗氧量,提高肌肉收缩效率,从而提升耐力运动表现。
那硝酸盐会不会有风险?
很多人会担心一个问题:硝酸盐和亚硝酸盐会不会形成致癌物,比如亚硝胺?
这个担忧曾经非常常见。
然而,目前的主流科学观点认为,对于通过蔬菜摄入的硝酸盐,这种风险极低。因为蔬菜中富含维生素C和多酚等抗氧化剂,能够有效抑制亚硝胺的形成。因此,从健康角度看,摄入富含硝酸盐的蔬菜所带来的益处远大于其潜在风险。
总之,口腔微生物组的硝酸盐代谢功能是宿主-微生物共生关系的一个典范。它不仅通过局部抗菌和pH调节作用维护口腔健康,还通过肠-唾液循环系统性地贡献于心血管健康。
这也带来了一个很有意义的启发:
将硝酸盐视为一种重要的益生元,将硝酸盐还原菌视为潜在的益生菌,为通过饮食和微生态干预来预防和管理慢性疾病提供了新的思路。
唾液是口腔环境的命脉,它不仅仅是水的简单混合物,而是一种复杂的生物流体,富含多种有机和无机成分。
在维持口腔微生物组与宿主之间的共生关系中,唾液扮演着不可或缺的守护者角色。它通过机械清洁、免疫防御、缓冲调节和组织保护等多重机制,主动塑造和调控着口腔微生态的平衡,是抵御口腔及全身感染的第一道关键防线。
唾液的物理与机械功能
冲洗与清洁
我们每天都在不断分泌和吞咽唾液,伴随着吞咽动作,唾液能够有效地将食物残渣、脱落的上皮细胞以及未牢固附着的微生物从口腔中清除,这一过程被称为“唾液清除”。
据估计,一个健康成年人每天仅通过吞咽唾液,
就能清除掉大约 800亿(8×10¹⁰)个细菌!
唾液流速是关键
高流速的唾液能更快地稀释和冲走食糖后产生的酸,以及减少细菌在牙面的停留时间,从而降低龋病的风险。相反,唾液分泌减少(口干症)的患者,其口腔细菌载量通常更高,患龋齿、牙周病和口腔念珠菌病的风险也显著增加。
润滑口腔,帮助吞咽和说话
除了冲洗功能,唾液还是口腔的重要润滑剂。
唾液中的黏蛋白等糖蛋白赋予了唾液黏弹性,使其能够在口腔软硬组织表面形成一层润滑膜。这层膜有几个非常实际的作用:
唾液作为口腔“守护者”的多重功能
编辑
DOI: 10.1007/978-3-031-79146-8_7
唾液的化学防御:不让口腔变酸
缓冲pH调节
细菌导致蛀牙的一个核心武器是:产酸。而唾液的一个重要任务,就是把口腔的酸碱度(pH值)维持在中性范围(大约 6.5 – 7.5 之间)。
唾液里自带了一套碳酸氢盐缓冲系统。当我们吃了酸性食物,或者细菌开始大量产酸时,这套系统就会迅速出动,把酸中和掉。
有意思的是,当你咀嚼食物时,唾液流速会加快,里面的碳酸氢盐浓度也会跟着升高,中和酸的能力就变得更强。
此外,一些口腔细菌也能通过分解唾液中的尿素产生氨,辅助提高pH值,共同维持口腔环境的稳定。
唾液和口腔微生物之间并不是简单的“防守与进攻”关系,很多时候更像是一种动态协作。
免疫防御:非特异性与特异性免疫
唾液并不是机械地“冲走细菌”,它本身还含有大量具有抗菌和免疫作用的分子,它们协同作用,构成一个强大的防御网络。
◖溶菌酶:直接破坏细菌细胞壁
溶菌酶能够水解革兰氏阳性菌细胞壁的肽聚糖,导致细菌裂解死亡。它还具有非酶依赖的抗革兰氏阴性菌活性,并能促进细菌聚集,便于清除。
◖乳铁蛋白:不给细菌“吃铁”
乳铁蛋白是一种铁结合蛋白,通过螯合游离的铁离子,剥夺了细菌生长所必需的铁元素,从而发挥抑菌作用(营养免疫)。此外,它还具有不依赖铁的直接杀菌和抗病毒活性。
◖乳过氧化物酶系统:抑制细菌产酸和代谢
该系统利用细菌代谢产生的过氧化氢(H₂O₂)和唾液中的硫氰酸盐(SCN⁻)作为底物,生成具有强氧化性的次硫氰酸(OSCN⁻),后者能抑制多种细菌的糖酵解酶,从而阻断其产酸和生长。
简单来说,就是让细菌“没法高效产酸、没法顺利生长”。
◖组蛋白、抗菌肽:广谱抗菌抗真菌
组蛋白是一类富含组氨酸的阳离子肽,具有广谱的抗真菌(特别是抗白色念珠菌)和抗菌活性。它们通过破坏微生物细胞膜的完整性或干扰其内部代谢来发挥作用。
防御素和 Cathelicidin (LL-37) 这些是小分子的阳离子抗菌肽,主要由上皮细胞和中性粒细胞分泌。它们能像分子飞镖一样插入微生物的细胞膜,形成孔道,导致细胞内容物泄漏而死亡。
◖sIgA:温和但精准的免疫控制者
分泌型免疫球蛋白A (sIgA)是唾液中最主要的抗体,也是黏膜适应性免疫的核心。
它的特别之处在于:不是通过强烈炎症来“消灭一切”,而是通过更温和的方式控制微生物。
sIgA能够特异性地结合入侵的微生物和毒素,通过免疫排斥机制阻止它们黏附到宿主细胞表面,并促进它们以聚集体的形式被唾液清除。sIgA在不引发强烈炎症反应的情况下控制微生物,是维持黏膜稳态的关键。
唾液中的非特异性与特异性免疫防御
编辑
DOI: 10.1007/978-3-031-79146-8_7
唾液会给口腔表面加上一层保护膜
唾液中的蛋白质和糖蛋白(如黏蛋白、富含脯氨酸蛋白、软蛋白等)会选择性地吸附在牙齿和口腔黏膜表面,形成一层厚度仅为几百纳米的无细胞有机薄膜,分别称为获得性釉质膜和黏膜膜。
这层唾液膜具有双重功能:
它作为一道物理屏障,保护牙釉质免受酸的直接侵蚀,减缓脱矿过程。同时,膜中的钙结合蛋白(如软蛋白)有助于将钙和磷酸盐离子富集在牙齿表面,促进再矿化(相当于帮助牙齿进行微小损伤的自我修复)。对于软组织,黏膜膜则提供了润滑和保湿,防止干燥和机械损伤。
这层膜还有一个非常有意思的生态学功能:
它会影响微生物最初如何在口腔表面定植。
不同的唾液蛋白会选择性地结合不同的细菌,相当于为特定微生物提供落脚点。这意味着,唾液膜并不是单纯被动地让细菌附着,而是在一定程度上选择性地决定谁先成为第一批定植者。
例如,α-淀粉酶可以结合某些链球菌,而富含脯氨酸蛋白则为另一些细菌提供受体。
而最早附着的那批细菌,往往会影响后续整个牙菌斑生物膜的形成顺序和组成。
总的来说,唾液是维持口腔微生态平衡的重要保障。可一旦唾液分泌减少或功能受损,原本稳定的菌群关系就可能被打破,口腔也会由健康走向失衡。接下来,我们就看看口腔微生态失调是如何发生的。
在健康状态下,口腔微生物组与宿主维持着一种动态的共生平衡。然而,当这种平衡被宿主、环境或微生物自身的因素打破时,就会导致失调。
失调并非简单地指有害细菌的增加,而是一个更复杂的生态学概念,指微生物群落的组成、结构和/或功能发生有害的改变,从而增加了宿主患病的风险。
口腔微生态失调是龋病、牙周炎等主要口腔疾病的核心驱动力,并与多种系统性疾病密切相关。
失调的生态学假说
理解口腔失调的关键在于“生态学假说”(Ecological Plaque Hypothesis)。该假说由Philip Marsh提出,这个假说认为,口腔疾病并不是单纯由菌太多引起,也不只是由某一种坏菌单独造成,而是局部环境发生改变后,整个微生物群发生了致病的重组。
简单来说,它强调三件事:
1
疾病的本质是生态失衡
在健康的口腔里,一些潜在致病菌其实本来就可能存在,只是数量很低,而且被共生菌群和宿主防御系统共同压制着。
问题不在于它们有没有,而在于潜在致病菌会不会在合适的环境下突然占上风。
2
环境变化是失调的起点
当口腔局部环境出现明显变化时,比如:
原有的微生物平衡就会被打破。某些原本不占优势的微生物,会因此获得更适合自己的生存条件。
1
菌群演替会推动疾病不断加重
一旦新的环境开始偏向某些致病相关微生物,它们就会逐渐增殖,并进一步改变周围环境。
这种改变又会继续压制共生菌、扶持致病菌,形成一个自我强化的恶性循环,最终推动疾病发生和进展。
龋病和牙周炎,就是两个典型例子。
——在龋病中:高糖让口腔变酸
如果长期频繁摄入糖分,口腔中的细菌就会不断把糖发酵成酸。于是,口腔环境反复酸化。
这种酸性环境抑制了对酸敏感的共生菌(如S. sanguinis),同时促进了耐酸和产酸菌(如变形链球菌和乳杆菌)的生长。这些菌的增殖又会产生更多的酸,使失调状态加剧,最终导致牙齿脱矿,龋病发生。
编辑
——在牙周炎中:缺氧和炎症改变生态位
牙周炎的过程则有所不同。
当菌斑长期堆积,牙龈沟内环境会逐渐变得更缺氧,同时炎症反应会带来更多组织分解产物和龈沟液。
这就为一些厌氧、蛋白水解型细菌创造了有利条件,比如牙龈卟啉单胞菌等。
这些细菌的毒力因子又会进一步刺激和放大宿主炎症反应,造成组织破坏、牙周袋加深,进而为更多厌氧菌提供栖息空间。
于是,牙周炎也进入了“环境改变—菌群演替—炎症加重”的循环。
牙周炎的病理过程不仅涉及到常见的细菌,还包括一些厌氧菌和蛋白水解型细菌的增殖等。这些细菌的丰度和比例变化能综合辅助评估牙周炎的风险。
编辑
<来源:谷禾口腔菌群检测数据库>
口腔微生态失调有哪些表现?
口腔微生物组的失调可以体现在多个层面,这些改变共同构成了疾病的微生物学基础。
◎ 物种组成改变
这是失调最直观的表现。
在龋病中,可见变形链球菌、乳杆菌和部分放线菌的丰度增加。
在牙周炎中,则表现为“红色复合体”(P. gingivalis, T. forsythia, T. denticola)和“橙色复合体”等厌氧菌群的富集,而与健康相关的链球菌、放线菌等共生菌比例下降。
◎ 多样性变化
失调对微生物多样性的影响因疾病而异。
在龋病中,由于强烈的酸性选择压力,微生物多样性通常会降低,少数耐酸菌占据主导地位。
在牙周炎中,由于牙周袋的形成创造了新的生态位,并且炎症反应提供了更丰富的营养,微生物多样性反而会增加。
◎ 功能代谢改变
失调不仅是物种的替换,更是整个群落功能的转变。
在龋病相关的生物膜中,糖酵解和产酸相关的代谢通路被上调。
在牙周炎相关的微生物组中,则表现为蛋白水解、氨基酸发酵、毒力因子(如LPS、牙龈蛋白酶)合成以及炎症诱导相关通路的富集。
◎ 生物膜空间结构改变
失调也会改变生物膜的物理结构。
例如,在致龋生物膜中,大量的胞外多糖(EPS)形成了一个致密的、酸性的微环境。
在牙周炎中,生物膜结构变得更加疏松,但更具侵袭性,细菌更容易从生物膜中脱落并侵入宿主组织。
这说明,疾病并不只是菌种名单变了,连它们在口腔里如何组织起来也变了。
是什么在推动口腔失调?
多种因素可以作为触发或加剧口腔失调的“生态压力”。
► 宿主因素
饮食:如前所述,高糖饮食是龋病失调的主要驱动力。频繁吃糖,比偶尔一次大量摄糖更容易反复制造酸性环境。
免疫状态:宿主免疫功能低下或免疫反应失调(如过度炎症)会无法有效控制致病菌,从而导致失调。例如,糖尿病患者的高血糖状态和受损的中性粒细胞功能,使其更容易发生严重的牙周炎。
唾液功能:唾液流速降低和缓冲能力下降会削弱口腔的自洁和中和酸的能力,为产酸菌的生长创造有利条件。
激素水平:青春期、妊娠期和更年期的激素波动会改变口腔环境,影响特定微生物的生长,可能暂时性地导致失调。
► 环境与行为因素
口腔卫生不良:不良的口腔卫生导致菌斑大量积聚,是牙龈炎和牙周炎失调的始动因素。
如果清洁不到位,微生物生物膜就会越来越成熟,生态环境也会越来越偏向致病状态。
吸烟与饮酒:吸烟会造成口腔局部缺氧,抑制有益的需氧/兼性厌氧菌,促进厌氧病原体的生长。酒精则可能直接影响微生物代谢并损害黏膜屏障。
药物使用:广谱抗生素会破坏正常的微生物群落,为机会性感染(如念珠菌病)打开大门。其他药物(如抗高血压药、抗抑郁药)可能通过引起口干,而间接导致失调。
►关键病原体:不是数量最多,却可能最会“带节奏”
“关键病原体假说”是生态学假说的延伸,它强调某些低丰度的微生物能够通过不成比例的巨大影响力来操纵宿主反应和微生物群落,从而引发失调。
牙龈卟啉单胞菌(P. gingivalis)是典型的关键病原体。
它虽然在菌斑中数量不多,但能通过其独特的毒力因子(如牙龈蛋白酶)破坏宿主的补体系统和中性粒细胞功能,造成局部免疫抑制。这种“被操纵”的炎症环境既能保护牙龈卟啉单胞菌自身免于被清除,又能为整个厌氧菌群落的生长提供营养(源自组织破坏和炎症渗出),最终导致一个协同致病的失调群落的形成。
它不只是自己受益,还把整个微生态都往致病方向带偏了。
总之,口腔微生态的失调是一个由多因素驱动的、复杂的生态学过程。它不仅仅是“坏细菌”战胜“好细菌”的简单故事,而是整个微生态系统在内外压力下失去稳态、功能转向致病方向的系统性失败。
未完待续,下期我们将继续讨论:
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。
主要参考文献
Dame-Teixeira N, Do T, Deng D. The Oral Microbiome and Us. Adv Exp Med Biol. 2025;1472:3-9.
Azevedo MJ, Kaan AM, Costa CFFA, Sampaio-Maia B, Zaura E. Acquisition of the Oral Microbiome. Adv Exp Med Biol. 2025;1472:13-29.
de Barros Santos HS, Pagnussatti MEL, Arthur RA. Symbiosis Between the Oral Microbiome and the Human Host: Microbial Homeostasis and Stability of the Host. Adv Exp Med Biol. 2025;1472:31-51.
Santonocito S, Polizzi A, Isola G. The Impact of Diet and Nutrition on the Oral Microbiome. Adv Exp Med Biol. 2025;1472:53-69.
Colombo APV, Lourenço TGB, de Oliveira AM, da Costa ALA. Link Between Oral and Gut Microbiomes: The Oral-Gut Axis. Adv Exp Med Biol. 2025;1472:71-87.
Washio, J., Takahashi, N. (2025). Nitrite Production from Nitrate in the Oral Microbiome and Its Contribution to Oral and Systemic Health. In: Dame-Teixeira, N., Deng, D., Do, T. (eds) Oral Microbiome. Advances in Experimental Medicine and Biology, vol 1472. Springer, Cham.
Heller D, Nery GB, Bachi ALL, Al-Hashimi I. Positive Role of Saliva in the Oral Microbiome. Adv Exp Med Biol. 2025;1472:103-118.
谷禾健康
编辑
在全球范围内,乳腺癌已成为女性发病率最高的恶性肿瘤,同时也是导致全球癌症相关死亡的第四大原因之一,严重威胁着女性的生命健康。为了最大程度降低复发风险、延长生存期,辅助化疗几乎是绝大多数乳腺癌患者的必经之路。然而,化疗在带来生存希望的同时,也常常伴随着一系列令人痛苦的副作用。其中,癌症相关疲劳便是最为常见、也最容易被忽视的问题之一。
对于许多乳腺癌患者来说,化疗的艰辛不仅在于治疗本身,相比于脱发、恶心等常见副作用,更在于一种挥之不去的、深入骨髓的疲惫感。这种疲惫并非休息一下就能缓解,它有一个专业名称——癌症相关疲劳(Cancer-Related Fatigue,简称 CRF)。它正悄然影响着无数患者的生活质量,甚至可能比疾病本身更令人困扰。
很多人会觉得,“化疗累一点不是很正常吗?休息休息就好了。” 但事实上,癌症相关疲劳绝非简单的身体劳累,它有着明确的医学定义。
美国国家综合癌症网络(NCCN)将其描述为一种持续存在、令人痛苦的身体、情感和 / 或认知层面的疲惫感,这种疲惫与近期的活动量不成比,会严重干扰正常生活,比如无法完成家务、难以专注交流、甚至连起床都觉得费力。
更关键的是,这种疲劳很难通过常规休息缓解。哪怕患者睡足 10 小时,依然会觉得浑身无力、精神涣散,这种持续性的消耗,比身体上的疼痛更易击垮患者的心理防线。
研究数据显示,超过90%的化疗患者会经历癌症相关疲劳,而在乳腺癌患者群体中,由于常需要接受多种治疗手段(如手术、放化疗、内分泌治疗等),疲劳的发生率和严重程度更高。高达30%的乳腺癌幸存者在治疗结束后数年,仍被重度疲劳所困扰。
这种长期疲惫不仅限制了她们的身体活动能力,还阻碍了重返工作岗位的步伐,对心理和社交生活造成了深远影响。癌症相关疲劳的危害远不止于主观感受上的不适。研究证实,疲劳的严重程度与患者的生活质量呈显著负相关,甚至可能影响生存结局。
尽管如此,目前医学界对癌症相关疲劳的内在发生机制仍知之甚少,这也导致临床上缺乏足够有效的、基于循证医学的干预手段。传统的治疗手段,如睡眠指导、运动疗法、心理干预等,虽然有一定帮助,但对于中重度疲劳的患者往往效果有限。这也使得寻找有效的治疗靶点、开发针对性干预措施变得尤为迫切。
随着人体“第二基因组”——肠道菌群研究的深入,科学家们开始将目光投向了我们的肠道。肠道中庞大的微生物生态系统不仅在消化吸收中发挥重要作用,更是人体最大的免疫器官,并通过复杂的神经-免疫-内分泌网络与大脑进行双向沟通,形成所谓的”肠-脑轴”。越来越多证据表明,肠道菌群可能在癌因性疲劳的发生发展中扮演关键角色。
化疗药物在杀死癌细胞的同时,往往也会攻击肠道中的有益菌群,导致菌群结构失衡。当肠道菌群失去平衡,肠道这道天然屏障就会受损出现“肠漏”,原本被“关”在肠道内的微生物产物和某些神经活性代谢物质,就可能进入血液循环。这些物质会沿着“肠-脑轴”激活神经、免疫和内分泌等多条通路,促使体内释放出一系列炎性因子和活性物质(比如IL-6、脂多糖等)。这些物质可能引发神经炎症,对中枢神经系统产生影响,最终表现为一种难以缓解的疲惫感。与此同时,这种内在变化还可能影响患者的行为,比如让人不自觉地减少活动、不愿社交,从而进一步加重疲劳的恶性循环。
2026年,发表在国际知名肿瘤学期刊《Frontiers in Oncology》上的一项最新前瞻性队列研究,该研究不仅证实了肠道菌群在化疗疲劳中的核心作用,最新的研究发现,我们或许可以通过分析患者化疗前的肠道菌群特征,提前预测她们在治疗过程中可能出现疲劳的风险。这为早期干预、预防严重疲劳的发生开辟了全新的思路。通过该研究深入探讨肠道菌群如何成为预测化疗疲劳的”生物密码”。
编辑
为了探究肠道菌群与癌因性疲劳之间的真实因果与预测关系,苏州大学的研究团队设计了一项严谨的前瞻性队列研究。与以往只能观察“当前状态”的横断面研究不同,前瞻性研究的特点在于它能预见未来,通过在事件发生前就开始收集数据,而不是回顾过去发生的事情。这样的设计能够避免回忆偏差,更准确地揭示因果关系和预测模型。
研究团队在2021年期间,从两家三甲医院招募了100名即将首次接受辅助化疗(共四个周期)的女性乳腺癌患者。为了确保研究的纯粹性,采用严格的入组标准:患者在入组前均没有精神疾病、胃肠道疾病、血液或内分泌系统疾病,且在过去三个月内未使用过抗生素或益生菌。这些严格的排除标准,旨在最大程度地保证所采集到的肠道菌群样本能反映其“原生态”,排除其他疾病或药物的干扰。所有患者均在开始辅助化疗之前入组,确保可以获得她们的”基线数据“——也就是在化疗前还未对肠道菌群产生影响的状态。采用配对粪便和血液样本,以探索潜在的神经免疫-内分泌途径。
为什么特别关注“第三个化疗周期”?
临床经验和既往纵向研究表明,接受四个周期化疗的乳腺癌患者,其疲劳感往往在第三个周期达到顶峰。此时,化疗药物的累积毒性最大,患者的生理和心理承受力往往处于临界点。
如果在这个阶段出现中重度疲劳,极易导致化疗减量甚至中断,直接影响患者的生存预后。因此,精准预测并干预第三周期的疲劳,具有极高的临床价值。
研究人员在患者化疗前(基线)收集了她们的粪便样本、血液样本,并进行了详细的疲劳量表评估(包括癌症疲劳量表CFS和视觉模拟疲劳量表VAFS)。
1
癌症疲劳量表
癌症疲劳量表(Cancer Fatigue Scale, CFS)由日本学者Okuyama于2000年开发的,广泛用于评估癌症患者疲劳症状,该量表包括躯体疲劳、情绪疲劳、认知疲劳三个维度,共15个条目。每个项目均采用5分制李克特量表(1-5)进行评分,总分范围为0-60。分数越高,表示疲劳越严重。
2
视觉模拟疲劳量表
视觉模拟疲劳量表(Visual Analog Fatigue Scale, VAFS)用于使用具有11个等级的标尺评估患者的疲劳水平,从“我不觉得累”到“我觉得筋疲力尽”。VAFS采用0-10的数值评分。
0表示无疲劳,1-3表示轻度疲劳,4-6表示中度疲劳,7-10表示重度疲劳。
随后,在患者进行到第三个化疗周期时,再次进行随访评估。根据第三周期的VAFS评分,患者被分为两组:
16S rDNA测序和微生物多样性数据分析
该项目所有患者的粪便样本,使用杭州谷禾提供的专用常温保存管进行采集和储存,并在谷禾实验室完成了16S扩增子测序及生物信息分析。
样本采用专用的DNA提取试剂盒(GHFDE100 DNA isolation kit)从粪便样本中提取细菌总基因组DNA,对16S rDNA基因的V4高变区进行PCR扩增。采用Illumina NovaSeq 6000高通量测序平台测序,结合生物信息学分析流程(如VSearch聚类、SILVA数据库注释等),计算得到从门到属各个分类层级的微生物相对丰度。
16S扩增子测序的临床转化价值
在众多微生物组学技术中,16S扩增子测序在临床队列探索中具有不可替代的价值。其优势主要体现在:
研究结果发现:
基线时,Y0组和Y1组在躯体疲劳、认知疲劳、疲劳总评分(CFS评分)和疲劳程度(VAFS评分)方面无显著差异(P >0.05)。
然而,在第三个化疗周期,观察到两组之间在身体疲劳、情绪疲劳、疲劳总评分和疲劳程度方面存在显著差异(P< 0.05),Y1组的所有评分均高于Y0组。而在化疗开始前,那些后来在第三周期发展为中重度疲劳(Y1组)的患者,其肠道菌群结构已经与轻度疲劳(Y0组)患者出现了显著差异。这表明,肠道菌群并非在化疗后才被动改变,而是在治疗开始前就可能决定了个体对化疗毒副反应的易感性。
1. 菌群失衡的早期信号:
B/F比值升高与变形菌门增殖
在门水平上,肠道菌群主要由拟杆菌门 、厚壁菌门 、变形菌门、梭杆菌门 (Fusobacteria) 构成,这四大菌门的总和占比均超过了菌群总数的95%。进一步研究发现,中重度疲劳组患者在化疗前的拟杆菌门/厚壁菌门比值(B/F比值)显著高于轻度疲劳组(1.15 vs 1.03, P = 0.043)。
注:B/F比值长期以来被视为衡量肠道菌群健康状况的宏观指标之一,其升高通常与肥胖、炎症性肠病等多种代谢和炎症性疾病相关,暗示着肠道微生态的失衡。
更值得注意的是,中重度疲劳组患者肠道内的变形菌门丰度显著增加(8.03% vs 5.01%, P = 0.039)。变形菌门被誉为“微生物界的杂草”,其在肠道中的过度扩张是菌群失调的典型标志。变形菌门下包含了大量潜在的致病菌,在大肠杆菌、沙门氏菌、幽门螺杆菌等常见致病菌中都占主导地位,它们大多属于革兰氏阴性菌,其细胞壁外膜富含脂多糖(LPS,即内毒素)。
注:LPS是引发人体全身性炎症反应的强烈触发器,其水平的升高意味着肠道内存在一个潜在的“炎症火药库”。
在菌群多样性方面,两组之间的α多样性无显著差异(Shannon指数P = 0.505,Simpson指数P = 0.820,Chao1指数P = 0.326);β多样性分析也显示两组菌群结构整体相似(ANOSIM及PERMANOVA分析P值均大于0.05),主坐标分析结果见图1。
图1:两组患者肠道菌群的α多样性与β多样性分析
编辑
虽然整体多样性指数(如Shannon, Simpson, Chao1)无显著差异,但PCoA图显示两组样本在空间分布上略有分离趋势,预示着特定菌群的丰度已悄然改变。
2. 产短链脂肪酸菌匮乏
通过LEfSe(线性判别分析效应量)深度挖掘,研究人员发现,轻度疲劳组(Y0组)患者肠道内富含考拉杆菌属(Phascolarctobacterium)和瘤胃菌科(Ruminococcaceae)等有益菌。这些细菌是肠道内著名的产短链脂肪酸菌(尤其是丁酸)。
注:丁酸不仅是肠道黏膜细胞的主要能量来源,能维护肠道屏障的完整性,还能穿透血脑屏障,发挥强大的抗炎和神经保护作用。
相反,中重度疲劳组(Y1组)患者体内这些“护城河”细菌的丰度显著降低,取而代之的是韦荣球菌属(Veillonella)、巨球型菌属(Megasphaera)以及肠杆菌目(Enterobacteriales)等条件致病菌的增多。这些菌群的富集,进一步加剧了肠道微环境的促炎状态(图2)。
图2:LEfSe分析揭示了两组患者在化疗前肠道菌群的特征性差异
编辑
红色代表中重度疲劳组(Y1)富集的菌群(如变形菌门下的γ-变形菌纲、肠杆菌目、肠杆菌科),绿色代表轻度疲劳组(Y0)富集的菌群(如瘤胃菌科下的RFN20、考拉杆菌属)。
3. 构建高精度预测模型:AUC高达0.82
基于上述发现,研究团队将基线肠道菌群特征与临床协变量结合,构建了一个多因素逻辑回归预测模型。这个模型的强大之处在于,它不仅仅依赖于单一指标,而是综合了多个维度的信息,模拟了临床决策的复杂性。
模型变量的协同解读
最终进入模型的变量包括:
◐ 菌 群 变 量
◐ 临 床 变 量
◐ 其 他 临 床 协 变 量
包括年龄、BMI、癌症分期等,尽管这些因素在单变量分析中可能与疲劳有关,但在加入了强大的菌群变量后,它们的独立预测能力被削弱。这反过来证明,肠道菌群可能是连接这些临床因素与疲劳结果的更底层的生物学中介。
结果显示,该模型预测患者在第三周期是否会发生中重度疲劳的准确率(AUC值)达到了0.82(95% CI: 0.73 – 0.90, P < 0.001)。 AUC值是衡量模型预测能力的标准,0.82意味着该模型具有“良好”到“优秀”的区分能力。
在最佳截断值下,该模型的敏感性为82.8%(能正确识别出82.8%的未来高疲劳患者),特异性为71.4%(能正确识别出71.4%的未来低疲劳患者)。这意味着,通过化疗前的一次粪便16S测序,结合简单的疼痛评估,医生就能以较高的准确率找出那些容易在化疗中严重疲劳症的高危患者,从而提前进行干预。
为了弄清肠道里的细菌究竟是如何影响大脑产生疲劳感,研究人员从100人的大队列中随机抽取了13名患者组成子队列:CRF无显著变化组(n=6)和CRF增加组(n=7)。
先导队列(n = 13)与整体队列(n = 100)在社会人口学或临床特征上无显著差异(均为 P > 0.05),验证了随机抽样子样本的代表性。对比了她们化疗前后肠道菌群和血液中神经免疫内分泌指标的动态变化。结果揭示了一条清晰的“肠-脑轴”致病链。
1
屏障破损:产丁酸菌Blautia减少与LPS泄漏
在化疗过程中,随着疲劳感加剧的患者,其肠道内的厚壁菌门,特别是经黏液真杆菌属(Blautia)的丰度出现了显著下降(P = 0.011)。Blautia是肠道内极其重要的产丁酸菌。当它减少时,肠道内短链脂肪酸(SCFAs)的产量锐减。这不仅导致肠道黏膜细胞失去营养支持,发生肠漏,还使得变形菌门产生的内毒素(LPS)趁机大量进入血液循环。相关性分析也证实,在化疗前,Blautia的丰度与血清LPS浓度呈显著负相关(图3)。
图3:肠道菌群与神经免疫内分泌指标
及疲劳评分的相关性热图
编辑
化疗前(a),Blautia与BDNF呈显著正相关,与疲劳评分(CRF)和LPS呈显著负相关。而巨球型菌属(Megasphaera)则与CRF、IL-6和NGF呈正相关,清晰地展示了“好菌”与“坏菌”的不同角色。
2
神经炎症:LPS如何抑制“大脑肥料”BDNF?
——LPS引发的免疫反应与神经炎症
进入血液的LPS会激活免疫系统(如TLR4受体),引发全身性的炎症反应,导致白细胞介素-6(IL-6)等促炎细胞因子释放。这些炎症因子和LPS能够穿透或破坏血脑屏障,引起中枢神经系统的神经炎症。
已有研究表明,在神经炎症模型中,LPS会激活大脑中的小胶质细胞。被激活的小胶质细胞会释放大量炎症介质,同时上调组蛋白去乙酰化酶2(HDAC2)的表达。HDAC2的过度活跃会抑制BDNF基因的转录,从而导致BDNF蛋白合成减少。
简而言之,LPS就像一个信号,告诉大脑的免疫系统进入战备状态,而这种“战备状态”的代价之一,就是抑制了用于日常维护和修复大脑的“肥料”(BDNF)的生产。
——BDNF浓度下降与疲劳的关系
研究还发现:疲劳加剧的患者,血清中的脑源性神经营养因子(BDNF)浓度显著下降(P = 0.035)。BDNF被誉为“大脑的肥料”,是调节神经元能量代谢、促进神经可塑性和维持情绪稳定的核心物质。其水平的下降,直接与抑郁、认知障碍和疲劳感相关。这一发现也与以往“肠道菌群影响神经营养信号”的研究结论一致。
——肠道菌群失调对疲劳的影响
结合研究结果,为我们可以清晰理解肠道菌群通过肠道-脑轴影响癌因性疲乏的机制提供了线索。
本研究中观察到的血清脑源性神经营养因子BDNF水平下降,形成炎症与神经营养支持不足之间的恶性循环。很可能是短链脂肪酸减少与全身炎症增强共同作用的关键结果,而BNDF作为神经元能量代谢与可塑性的核心调控因子,其水平降低可能直接导致中枢性疲劳的发生(图4)。
图4:肠道菌群通过“肠-脑轴”影响癌因性疲劳的机制图
编辑
化疗导致菌群失调(产SCFA菌↓,革兰氏阴性菌↑) → 肠道屏障受损,LPS入血 → 激活TLR4等通路,引发全身炎症(IL-6↑) → 炎症信号和LPS穿过血脑屏障,抑制大脑BDNF表达(BDNF↓) → 最终导致中枢性疲劳(CRF↑)。
✍ 科普延伸:与“慢性疲劳综合征”异曲同工
其实,不仅是癌症化疗患者,在普通的肌痛性脑脊髓炎/慢性疲劳综合征(ME/CFS)患者中,科学家也观察到了极其相似的菌群特征。
一篇于2025年发表在《Journal of Translational Medicine》的综述指出,ME/CFS患者普遍存在肠道菌群失调,其核心特征同样是促炎类群(如变形菌门)增加,而产短链脂肪酸的有益菌(如粪杆菌、罗斯氏菌)减少。
这种跨疾病的共性,强有力地印证了本研究的结论:化疗作为一种强烈的外部冲击,诱导或加剧了与慢性疲劳疾病相似的肠道微生态失衡模式,最终通过“肠-脑轴”的神经炎症通路,在大脑中“投射”出了难以克服的疲劳感。
这项研究的重要价值在于,癌因性疲劳本是一种主观的、难以评估的症状,通过早期肠道菌群检测结合疲劳量表评估和相关血液标志物检测,可以为临床医生和患者提供了早期干预和防控的可能性。
总体而言,苏州大学的这项研究不仅为我们描绘了肠道菌群、神经免疫内分泌系统与化疗疲劳之间的复杂网络,更进一步证实并拓展了以往的研究结论:化疗前的肠道菌群特征,有望成为预测乳腺癌患者化疗期间CRF的生物标志物,例如,通过化疗前肠道菌群检测,评估其B/F比值、变形菌门丰度及产丁酸菌的比例,将可能成为由化疗引起的癌因性疲劳的重要评估预测指标。医生可以提前介入,给予更积极、更具针对性的支持性辅助干预。
通过监测血液标志物,来动态评估干预效果。血清BDNF水平的下降与疲劳加重密切相关。在临床实践中,血清BDNF可以作为一种便捷的血液生物标志物,用于动态追踪患者的疲劳进展,为干预措施的有效性提供有力证据。
我们可以从以下几个维度构建抗疲劳防线:
肠道菌群,作为连接化疗药物、宿主免疫和中枢神经系统的关键枢纽,未来有望成为肿瘤支持治疗的核心关注点。随着16S rDNA测序等高通量微生物组学技术的普及与成本降低,个体化肠道菌群检测或将成为肿瘤精准治疗不可或缺的一环。
注:本账号内容仅供学习和交流,不构成任何形式的医疗建议。